BRPI0908879B1 - Método de degradação de planta, coquetel de degradação de plantas, material de planta homogeneizado e coquetel de enzimas - Google Patents
Método de degradação de planta, coquetel de degradação de plantas, material de planta homogeneizado e coquetel de enzimas Download PDFInfo
- Publication number
- BRPI0908879B1 BRPI0908879B1 BRPI0908879-2A BRPI0908879A BRPI0908879B1 BR PI0908879 B1 BRPI0908879 B1 BR PI0908879B1 BR PI0908879 A BRPI0908879 A BR PI0908879A BR PI0908879 B1 BRPI0908879 B1 BR PI0908879B1
- Authority
- BR
- Brazil
- Prior art keywords
- plant
- cocktail
- enzyme
- biomass
- degradation
- Prior art date
Links
- 102000004190 Enzymes Human genes 0.000 title claims abstract description 214
- 108090000790 Enzymes Proteins 0.000 title claims abstract description 214
- 230000015556 catabolic process Effects 0.000 title claims abstract description 67
- 238000006731 degradation reaction Methods 0.000 title claims abstract description 67
- 239000000463 material Substances 0.000 title claims abstract description 58
- 238000000034 method Methods 0.000 title claims description 53
- 210000003763 chloroplast Anatomy 0.000 claims abstract description 94
- 239000002028 Biomass Substances 0.000 claims abstract description 67
- 241000196324 Embryophyta Species 0.000 claims description 214
- 108090000623 proteins and genes Proteins 0.000 claims description 78
- 108010059892 Cellulase Proteins 0.000 claims description 48
- 108010087558 pectate lyase Proteins 0.000 claims description 46
- 235000000346 sugar Nutrition 0.000 claims description 33
- 210000004027 cell Anatomy 0.000 claims description 30
- 239000000284 extract Substances 0.000 claims description 29
- 102000004169 proteins and genes Human genes 0.000 claims description 28
- 101710121765 Endo-1,4-beta-xylanase Proteins 0.000 claims description 27
- 108090001060 Lipase Proteins 0.000 claims description 26
- 102000004882 Lipase Human genes 0.000 claims description 25
- 150000008163 sugars Chemical class 0.000 claims description 25
- 241000207199 Citrus Species 0.000 claims description 23
- 239000004367 Lipase Substances 0.000 claims description 23
- 235000020971 citrus fruits Nutrition 0.000 claims description 23
- 235000019421 lipase Nutrition 0.000 claims description 23
- 239000002023 wood Substances 0.000 claims description 22
- 239000000872 buffer Substances 0.000 claims description 20
- 108010047754 beta-Glucosidase Proteins 0.000 claims description 18
- -1 swolenin Proteins 0.000 claims description 18
- 102000006995 beta-Glucosidase Human genes 0.000 claims description 16
- 229920002230 Pectic acid Polymers 0.000 claims description 15
- AEMOLEFTQBMNLQ-BKBMJHBISA-N alpha-D-galacturonic acid Chemical compound O[C@H]1O[C@H](C(O)=O)[C@H](O)[C@H](O)[C@H]1O AEMOLEFTQBMNLQ-BKBMJHBISA-N 0.000 claims description 15
- 101000874334 Dalbergia nigrescens Isoflavonoid 7-O-beta-apiosyl-glucoside beta-glycosidase Proteins 0.000 claims description 12
- 101000757733 Enterococcus faecalis (strain ATCC 700802 / V583) Autolysin Proteins 0.000 claims description 12
- 101000757734 Mycolicibacterium phlei 38 kDa autolysin Proteins 0.000 claims description 12
- 108010003581 Ribulose-bisphosphate carboxylase Proteins 0.000 claims description 12
- 150000001875 compounds Chemical class 0.000 claims description 12
- 108010093941 acetylxylan esterase Proteins 0.000 claims description 11
- 108010080434 cephalosporin-C deacetylase Proteins 0.000 claims description 11
- 239000007974 sodium acetate buffer Substances 0.000 claims description 11
- QKNYBSVHEMOAJP-UHFFFAOYSA-N 2-amino-2-(hydroxymethyl)propane-1,3-diol;hydron;chloride Chemical compound Cl.OCC(N)(CO)CO QKNYBSVHEMOAJP-UHFFFAOYSA-N 0.000 claims description 9
- 108090000856 Lyases Proteins 0.000 claims description 9
- 102000004317 Lyases Human genes 0.000 claims description 9
- 230000001580 bacterial effect Effects 0.000 claims description 9
- PXIPVTKHYLBLMZ-UHFFFAOYSA-N Sodium azide Chemical compound [Na+].[N-]=[N+]=[N-] PXIPVTKHYLBLMZ-UHFFFAOYSA-N 0.000 claims description 8
- 101710093028 Pectate trisaccharide-lyase Proteins 0.000 claims description 6
- 210000002706 plastid Anatomy 0.000 claims description 6
- 240000008042 Zea mays Species 0.000 claims description 5
- 235000005824 Zea mays ssp. parviglumis Nutrition 0.000 claims description 5
- 235000002017 Zea mays subsp mays Nutrition 0.000 claims description 5
- 235000013339 cereals Nutrition 0.000 claims description 5
- 235000005822 corn Nutrition 0.000 claims description 5
- 230000029087 digestion Effects 0.000 claims description 5
- 239000000137 peptide hydrolase inhibitor Substances 0.000 claims description 5
- 235000016068 Berberis vulgaris Nutrition 0.000 claims description 4
- 241000335053 Beta vulgaris Species 0.000 claims description 4
- 240000000111 Saccharum officinarum Species 0.000 claims description 4
- 235000007201 Saccharum officinarum Nutrition 0.000 claims description 4
- 241000209140 Triticum Species 0.000 claims description 4
- 235000021307 Triticum Nutrition 0.000 claims description 4
- 230000000593 degrading effect Effects 0.000 claims description 4
- 235000013399 edible fruits Nutrition 0.000 claims description 4
- 229940124158 Protease/peptidase inhibitor Drugs 0.000 claims description 3
- 240000005979 Hordeum vulgare Species 0.000 claims description 2
- 235000007340 Hordeum vulgare Nutrition 0.000 claims description 2
- 102000007056 Recombinant Fusion Proteins Human genes 0.000 claims 3
- 108010008281 Recombinant Fusion Proteins Proteins 0.000 claims 3
- 102100031780 Endonuclease Human genes 0.000 claims 2
- 108010042407 Endonucleases Proteins 0.000 claims 2
- 229940042399 direct acting antivirals protease inhibitors Drugs 0.000 claims 2
- 235000015696 Portulacaria afra Nutrition 0.000 claims 1
- 235000018747 Typha elephantina Nutrition 0.000 claims 1
- 244000177175 Typha elephantina Species 0.000 claims 1
- 108010045466 endoglucanase CelD Proteins 0.000 claims 1
- 239000006166 lysate Substances 0.000 claims 1
- LFQSCWFLJHTTHZ-UHFFFAOYSA-N Ethanol Chemical compound CCO LFQSCWFLJHTTHZ-UHFFFAOYSA-N 0.000 abstract description 47
- 238000004519 manufacturing process Methods 0.000 abstract description 46
- 241000894006 Bacteria Species 0.000 abstract description 10
- 239000002551 biofuel Substances 0.000 abstract description 8
- 238000007796 conventional method Methods 0.000 abstract 1
- 229940088598 enzyme Drugs 0.000 description 200
- 230000000694 effects Effects 0.000 description 58
- 239000000758 substrate Substances 0.000 description 44
- 244000061176 Nicotiana tabacum Species 0.000 description 42
- 235000002637 Nicotiana tabacum Nutrition 0.000 description 42
- 238000006460 hydrolysis reaction Methods 0.000 description 41
- 230000007062 hydrolysis Effects 0.000 description 40
- 239000000523 sample Substances 0.000 description 35
- 230000014509 gene expression Effects 0.000 description 32
- WQZGKKKJIJFFOK-GASJEMHNSA-N Glucose Natural products OC[C@H]1OC(O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-GASJEMHNSA-N 0.000 description 31
- 241000588724 Escherichia coli Species 0.000 description 28
- 125000003275 alpha amino acid group Chemical group 0.000 description 28
- 239000008103 glucose Substances 0.000 description 28
- 108010005400 cutinase Proteins 0.000 description 26
- 108020004414 DNA Proteins 0.000 description 22
- 239000000287 crude extract Substances 0.000 description 22
- 230000002255 enzymatic effect Effects 0.000 description 22
- 235000018102 proteins Nutrition 0.000 description 22
- 229920002678 cellulose Polymers 0.000 description 20
- 239000001913 cellulose Substances 0.000 description 20
- 235000010980 cellulose Nutrition 0.000 description 20
- 238000006243 chemical reaction Methods 0.000 description 20
- 229940106157 cellulase Drugs 0.000 description 19
- ZRWPUFFVAOMMNM-UHFFFAOYSA-N Patulin Chemical compound OC1OCC=C2OC(=O)C=C12 ZRWPUFFVAOMMNM-UHFFFAOYSA-N 0.000 description 18
- 229920002134 Carboxymethyl cellulose Polymers 0.000 description 17
- 230000001965 increasing effect Effects 0.000 description 17
- 238000003556 assay Methods 0.000 description 15
- 235000010948 carboxy methyl cellulose Nutrition 0.000 description 15
- 108010008885 Cellulose 1,4-beta-Cellobiosidase Proteins 0.000 description 14
- 108090000637 alpha-Amylases Proteins 0.000 description 14
- 102000004139 alpha-Amylases Human genes 0.000 description 14
- 229940024171 alpha-amylase Drugs 0.000 description 14
- 235000001014 amino acid Nutrition 0.000 description 14
- 108010002430 hemicellulase Proteins 0.000 description 14
- 239000013598 vector Substances 0.000 description 14
- 241000499912 Trichoderma reesei Species 0.000 description 13
- 229940024606 amino acid Drugs 0.000 description 13
- 150000001413 amino acids Chemical class 0.000 description 13
- 230000010354 integration Effects 0.000 description 13
- ZHNUHDYFZUAESO-UHFFFAOYSA-N Formamide Chemical compound NC=O ZHNUHDYFZUAESO-UHFFFAOYSA-N 0.000 description 12
- 108700019146 Transgenes Proteins 0.000 description 12
- 229940059442 hemicellulase Drugs 0.000 description 12
- 108090000765 processed proteins & peptides Proteins 0.000 description 12
- 102000004196 processed proteins & peptides Human genes 0.000 description 12
- 239000000047 product Substances 0.000 description 12
- LWFUFLREGJMOIZ-UHFFFAOYSA-N 3,5-dinitrosalicylic acid Chemical compound OC(=O)C1=CC([N+]([O-])=O)=CC([N+]([O-])=O)=C1O LWFUFLREGJMOIZ-UHFFFAOYSA-N 0.000 description 11
- 238000000855 fermentation Methods 0.000 description 11
- 230000004151 fermentation Effects 0.000 description 11
- 238000012360 testing method Methods 0.000 description 11
- FAPWRFPIFSIZLT-UHFFFAOYSA-M Sodium chloride Chemical compound [Na+].[Cl-] FAPWRFPIFSIZLT-UHFFFAOYSA-M 0.000 description 10
- 230000007071 enzymatic hydrolysis Effects 0.000 description 10
- 238000009396 hybridization Methods 0.000 description 10
- 108010062085 ligninase Proteins 0.000 description 10
- 239000002773 nucleotide Substances 0.000 description 10
- 125000003729 nucleotide group Chemical group 0.000 description 10
- 230000009466 transformation Effects 0.000 description 10
- 102000005575 Cellulases Human genes 0.000 description 9
- 108010084185 Cellulases Proteins 0.000 description 9
- SRBFZHDQGSBBOR-IOVATXLUSA-N D-xylopyranose Chemical compound O[C@@H]1COC(O)[C@H](O)[C@H]1O SRBFZHDQGSBBOR-IOVATXLUSA-N 0.000 description 9
- 108050000194 Expansin Proteins 0.000 description 9
- 238000002105 Southern blotting Methods 0.000 description 9
- 108010055059 beta-Mannosidase Proteins 0.000 description 9
- 238000006047 enzymatic hydrolysis reaction Methods 0.000 description 9
- 239000012634 fragment Substances 0.000 description 9
- 239000000203 mixture Substances 0.000 description 9
- 229920001184 polypeptide Polymers 0.000 description 9
- 239000011541 reaction mixture Substances 0.000 description 9
- 239000000243 solution Substances 0.000 description 9
- 230000009261 transgenic effect Effects 0.000 description 9
- 102100032487 Beta-mannosidase Human genes 0.000 description 8
- 241000427940 Fusarium solani Species 0.000 description 8
- 101710117655 Maltogenic alpha-amylase Proteins 0.000 description 8
- 241000187479 Mycobacterium tuberculosis Species 0.000 description 8
- KRWTWSSMURUMDE-UHFFFAOYSA-N [1-(2-methoxynaphthalen-1-yl)naphthalen-2-yl]-diphenylphosphane Chemical compound COC1=CC=C2C=CC=CC2=C1C(C1=CC=CC=C1C=C1)=C1P(C=1C=CC=CC=1)C1=CC=CC=C1 KRWTWSSMURUMDE-UHFFFAOYSA-N 0.000 description 8
- 238000011534 incubation Methods 0.000 description 8
- 238000012021 retail method of payment Methods 0.000 description 8
- BTJIUGUIPKRLHP-UHFFFAOYSA-N 4-nitrophenol Chemical compound OC1=CC=C([N+]([O-])=O)C=C1 BTJIUGUIPKRLHP-UHFFFAOYSA-N 0.000 description 7
- 101100399280 Bacillus subtilis (strain 168) licH gene Proteins 0.000 description 7
- 108010001817 Endo-1,4-beta Xylanases Proteins 0.000 description 7
- 101100113310 Escherichia coli (strain K12) chbR gene Proteins 0.000 description 7
- 101710112457 Exoglucanase Proteins 0.000 description 7
- 229920002488 Hemicellulose Polymers 0.000 description 7
- 229920000057 Mannan Polymers 0.000 description 7
- 241000193448 Ruminiclostridium thermocellum Species 0.000 description 7
- 238000004458 analytical method Methods 0.000 description 7
- 101150072516 cbhA gene Proteins 0.000 description 7
- 101150072511 celD gene Proteins 0.000 description 7
- 239000003153 chemical reaction reagent Substances 0.000 description 7
- 239000000419 plant extract Substances 0.000 description 7
- 150000004804 polysaccharides Chemical class 0.000 description 7
- 239000011734 sodium Substances 0.000 description 7
- 229920001221 xylan Polymers 0.000 description 7
- 150000004823 xylans Chemical class 0.000 description 7
- 101100136076 Aspergillus oryzae (strain ATCC 42149 / RIB 40) pel1 gene Proteins 0.000 description 6
- IJGRMHOSHXDMSA-UHFFFAOYSA-N Atomic nitrogen Chemical compound N#N IJGRMHOSHXDMSA-UHFFFAOYSA-N 0.000 description 6
- 108020004566 Transfer RNA Proteins 0.000 description 6
- 238000009835 boiling Methods 0.000 description 6
- 238000003306 harvesting Methods 0.000 description 6
- 238000002156 mixing Methods 0.000 description 6
- 101150040383 pel2 gene Proteins 0.000 description 6
- 101150050446 pelB gene Proteins 0.000 description 6
- 108091033319 polynucleotide Proteins 0.000 description 6
- 102000040430 polynucleotide Human genes 0.000 description 6
- 239000002157 polynucleotide Substances 0.000 description 6
- 230000008569 process Effects 0.000 description 6
- 230000008929 regeneration Effects 0.000 description 6
- 238000011069 regeneration method Methods 0.000 description 6
- 230000001105 regulatory effect Effects 0.000 description 6
- 229960000268 spectinomycin Drugs 0.000 description 6
- DGAQECJNVWCQMB-PUAWFVPOSA-M Ilexoside XXIX Chemical compound C[C@@H]1CC[C@@]2(CC[C@@]3(C(=CC[C@H]4[C@]3(CC[C@@H]5[C@@]4(CC[C@@H](C5(C)C)OS(=O)(=O)[O-])C)C)[C@@H]2[C@]1(C)O)C)C(=O)O[C@H]6[C@@H]([C@H]([C@@H]([C@H](O6)CO)O)O)O.[Na+] DGAQECJNVWCQMB-PUAWFVPOSA-M 0.000 description 5
- 108010029182 Pectin lyase Proteins 0.000 description 5
- 101150067314 aadA gene Proteins 0.000 description 5
- 230000009471 action Effects 0.000 description 5
- IAJILQKETJEXLJ-RSJOWCBRSA-N aldehydo-D-galacturonic acid Chemical compound O=C[C@H](O)[C@@H](O)[C@@H](O)[C@H](O)C(O)=O IAJILQKETJEXLJ-RSJOWCBRSA-N 0.000 description 5
- SRBFZHDQGSBBOR-UHFFFAOYSA-N beta-D-Pyranose-Lyxose Natural products OC1COC(O)C(O)C1O SRBFZHDQGSBBOR-UHFFFAOYSA-N 0.000 description 5
- 238000010790 dilution Methods 0.000 description 5
- 239000012895 dilution Substances 0.000 description 5
- 238000011156 evaluation Methods 0.000 description 5
- 229920001282 polysaccharide Polymers 0.000 description 5
- 239000005017 polysaccharide Substances 0.000 description 5
- 229910052708 sodium Inorganic materials 0.000 description 5
- 239000011780 sodium chloride Substances 0.000 description 5
- UNFWWIHTNXNPBV-WXKVUWSESA-N spectinomycin Chemical compound O([C@@H]1[C@@H](NC)[C@@H](O)[C@H]([C@@H]([C@H]1O1)O)NC)[C@]2(O)[C@H]1O[C@H](C)CC2=O UNFWWIHTNXNPBV-WXKVUWSESA-N 0.000 description 5
- 239000000126 substance Substances 0.000 description 5
- 238000005406 washing Methods 0.000 description 5
- 101100049989 Aspergillus niger xlnB gene Proteins 0.000 description 4
- 101100189842 Aspergillus oryzae (strain ATCC 42149 / RIB 40) pel2 gene Proteins 0.000 description 4
- CURLTUGMZLYLDI-UHFFFAOYSA-N Carbon dioxide Chemical compound O=C=O CURLTUGMZLYLDI-UHFFFAOYSA-N 0.000 description 4
- GUBGYTABKSRVRQ-CUHNMECISA-N D-Cellobiose Chemical compound O[C@@H]1[C@@H](O)[C@H](O)[C@@H](CO)O[C@H]1O[C@@H]1[C@@H](CO)OC(O)[C@H](O)[C@H]1O GUBGYTABKSRVRQ-CUHNMECISA-N 0.000 description 4
- 102000005548 Hexokinase Human genes 0.000 description 4
- 108700040460 Hexokinases Proteins 0.000 description 4
- 101100289186 Mycobacterium tuberculosis (strain ATCC 25618 / H37Rv) lipY gene Proteins 0.000 description 4
- 238000010222 PCR analysis Methods 0.000 description 4
- DBMJMQXJHONAFJ-UHFFFAOYSA-M Sodium laurylsulphate Chemical compound [Na+].CCCCCCCCCCCCOS([O-])(=O)=O DBMJMQXJHONAFJ-UHFFFAOYSA-M 0.000 description 4
- PYMYPHUHKUWMLA-UHFFFAOYSA-N arabinose Natural products OCC(O)C(O)C(O)C=O PYMYPHUHKUWMLA-UHFFFAOYSA-N 0.000 description 4
- 210000002421 cell wall Anatomy 0.000 description 4
- 238000007824 enzymatic assay Methods 0.000 description 4
- 238000002474 experimental method Methods 0.000 description 4
- 230000002538 fungal effect Effects 0.000 description 4
- 230000012010 growth Effects 0.000 description 4
- 229920005610 lignin Polymers 0.000 description 4
- 239000007788 liquid Substances 0.000 description 4
- 230000004048 modification Effects 0.000 description 4
- 238000012986 modification Methods 0.000 description 4
- 238000005457 optimization Methods 0.000 description 4
- 101150056092 pelD gene Proteins 0.000 description 4
- 239000013612 plasmid Substances 0.000 description 4
- 229920000642 polymer Polymers 0.000 description 4
- 238000012545 processing Methods 0.000 description 4
- 101150075980 psbA gene Proteins 0.000 description 4
- 238000000746 purification Methods 0.000 description 4
- 150000003839 salts Chemical class 0.000 description 4
- 239000001509 sodium citrate Substances 0.000 description 4
- 125000006850 spacer group Chemical group 0.000 description 4
- 230000017260 vegetative to reproductive phase transition of meristem Effects 0.000 description 4
- 239000002699 waste material Substances 0.000 description 4
- 238000001262 western blot Methods 0.000 description 4
- 101150041186 xyn2 gene Proteins 0.000 description 4
- OMDQUFIYNPYJFM-XKDAHURESA-N (2r,3r,4s,5r,6s)-2-(hydroxymethyl)-6-[[(2r,3s,4r,5s,6r)-4,5,6-trihydroxy-3-[(2s,3s,4s,5s,6r)-3,4,5-trihydroxy-6-(hydroxymethyl)oxan-2-yl]oxyoxan-2-yl]methoxy]oxane-3,4,5-triol Chemical compound O[C@@H]1[C@@H](O)[C@@H](O)[C@@H](CO)O[C@@H]1OC[C@@H]1[C@@H](O[C@H]2[C@H]([C@@H](O)[C@H](O)[C@@H](CO)O2)O)[C@H](O)[C@H](O)[C@H](O)O1 OMDQUFIYNPYJFM-XKDAHURESA-N 0.000 description 3
- OKTJSMMVPCPJKN-UHFFFAOYSA-N Carbon Chemical compound [C] OKTJSMMVPCPJKN-UHFFFAOYSA-N 0.000 description 3
- 240000002319 Citrus sinensis Species 0.000 description 3
- 235000005976 Citrus sinensis Nutrition 0.000 description 3
- 229920000832 Cutin Polymers 0.000 description 3
- AEMOLEFTQBMNLQ-DTEWXJGMSA-N D-Galacturonic acid Natural products O[C@@H]1O[C@H](C(O)=O)[C@H](O)[C@H](O)[C@H]1O AEMOLEFTQBMNLQ-DTEWXJGMSA-N 0.000 description 3
- 229920000926 Galactomannan Polymers 0.000 description 3
- IAJILQKETJEXLJ-UHFFFAOYSA-N Galacturonsaeure Natural products O=CC(O)C(O)C(O)C(O)C(O)=O IAJILQKETJEXLJ-UHFFFAOYSA-N 0.000 description 3
- 108010054320 Lignin peroxidase Proteins 0.000 description 3
- 229920000161 Locust bean gum Polymers 0.000 description 3
- 244000046052 Phaseolus vulgaris Species 0.000 description 3
- 235000010627 Phaseolus vulgaris Nutrition 0.000 description 3
- HEMHJVSKTPXQMS-UHFFFAOYSA-M Sodium hydroxide Chemical compound [OH-].[Na+] HEMHJVSKTPXQMS-UHFFFAOYSA-M 0.000 description 3
- 241000223259 Trichoderma Species 0.000 description 3
- 230000003321 amplification Effects 0.000 description 3
- AEMOLEFTQBMNLQ-UHFFFAOYSA-N beta-D-galactopyranuronic acid Natural products OC1OC(C(O)=O)C(O)C(O)C1O AEMOLEFTQBMNLQ-UHFFFAOYSA-N 0.000 description 3
- 238000012790 confirmation Methods 0.000 description 3
- 238000010276 construction Methods 0.000 description 3
- 108010091371 endoglucanase 1 Proteins 0.000 description 3
- 108010091384 endoglucanase 2 Proteins 0.000 description 3
- 108010092450 endoglucanase Z Proteins 0.000 description 3
- 239000000835 fiber Substances 0.000 description 3
- 239000000499 gel Substances 0.000 description 3
- PCHJSUWPFVWCPO-UHFFFAOYSA-N gold Chemical compound [Au] PCHJSUWPFVWCPO-UHFFFAOYSA-N 0.000 description 3
- 239000010931 gold Substances 0.000 description 3
- 229910052737 gold Inorganic materials 0.000 description 3
- 238000002744 homologous recombination Methods 0.000 description 3
- 230000006801 homologous recombination Effects 0.000 description 3
- 239000003999 initiator Substances 0.000 description 3
- 239000000711 locust bean gum Substances 0.000 description 3
- 235000010420 locust bean gum Nutrition 0.000 description 3
- LUEWUZLMQUOBSB-GFVSVBBRSA-N mannan Chemical class O[C@H]1[C@@H](O)[C@H](O)[C@@H](CO)O[C@H]1O[C@@H]1[C@@H](CO)O[C@@H](O[C@@H]2[C@H](O[C@@H](O[C@H]3[C@H](O[C@@H](O)[C@@H](O)[C@H]3O)CO)[C@@H](O)[C@H]2O)CO)[C@H](O)[C@H]1O LUEWUZLMQUOBSB-GFVSVBBRSA-N 0.000 description 3
- 229910052757 nitrogen Inorganic materials 0.000 description 3
- 238000003199 nucleic acid amplification method Methods 0.000 description 3
- 229920001277 pectin Polymers 0.000 description 3
- 101150098295 pel1 gene Proteins 0.000 description 3
- 238000002360 preparation method Methods 0.000 description 3
- NLJMYIDDQXHKNR-UHFFFAOYSA-K sodium citrate Chemical compound O.O.[Na+].[Na+].[Na+].[O-]C(=O)CC(O)(CC([O-])=O)C([O-])=O NLJMYIDDQXHKNR-UHFFFAOYSA-K 0.000 description 3
- 239000011122 softwood Substances 0.000 description 3
- 150000003626 triacylglycerols Chemical class 0.000 description 3
- MJYQFWSXKFLTAY-OVEQLNGDSA-N (2r,3r)-2,3-bis[(4-hydroxy-3-methoxyphenyl)methyl]butane-1,4-diol;(2r,3r,4s,5s,6r)-6-(hydroxymethyl)oxane-2,3,4,5-tetrol Chemical compound OC[C@H]1O[C@@H](O)[C@H](O)[C@@H](O)[C@@H]1O.C1=C(O)C(OC)=CC(C[C@@H](CO)[C@H](CO)CC=2C=C(OC)C(O)=CC=2)=C1 MJYQFWSXKFLTAY-OVEQLNGDSA-N 0.000 description 2
- LUEWUZLMQUOBSB-FSKGGBMCSA-N (2s,3s,4s,5s,6r)-2-[(2r,3s,4r,5r,6s)-6-[(2r,3s,4r,5s,6s)-4,5-dihydroxy-2-(hydroxymethyl)-6-[(2r,4r,5s,6r)-4,5,6-trihydroxy-2-(hydroxymethyl)oxan-3-yl]oxyoxan-3-yl]oxy-4,5-dihydroxy-2-(hydroxymethyl)oxan-3-yl]oxy-6-(hydroxymethyl)oxane-3,4,5-triol Chemical compound O[C@H]1[C@@H](O)[C@H](O)[C@@H](CO)O[C@H]1O[C@@H]1[C@@H](CO)O[C@@H](O[C@@H]2[C@H](O[C@@H](OC3[C@H](O[C@@H](O)[C@@H](O)[C@H]3O)CO)[C@@H](O)[C@H]2O)CO)[C@H](O)[C@H]1O LUEWUZLMQUOBSB-FSKGGBMCSA-N 0.000 description 2
- DCXYFEDJOCDNAF-UHFFFAOYSA-N Asparagine Chemical compound OC(=O)C(N)CC(N)=O DCXYFEDJOCDNAF-UHFFFAOYSA-N 0.000 description 2
- 241000972773 Aulopiformes Species 0.000 description 2
- 238000009010 Bradford assay Methods 0.000 description 2
- 240000002791 Brassica napus Species 0.000 description 2
- 235000004977 Brassica sinapistrum Nutrition 0.000 description 2
- 229920000324 Cellulosome Polymers 0.000 description 2
- 235000007516 Chrysanthemum Nutrition 0.000 description 2
- 244000189548 Chrysanthemum x morifolium Species 0.000 description 2
- 229920000742 Cotton Polymers 0.000 description 2
- WQZGKKKJIJFFOK-QTVWNMPRSA-N D-mannopyranose Chemical compound OC[C@H]1OC(O)[C@@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-QTVWNMPRSA-N 0.000 description 2
- 101100352566 Emericella nidulans (strain FGSC A4 / ATCC 38163 / CBS 112.46 / NRRL 194 / M139) plyB gene Proteins 0.000 description 2
- 108700024394 Exon Proteins 0.000 description 2
- 241000233866 Fungi Species 0.000 description 2
- 229920002324 Galactoglucomannan Polymers 0.000 description 2
- 241000735332 Gerbera Species 0.000 description 2
- 229920002581 Glucomannan Polymers 0.000 description 2
- DHMQDGOQFOQNFH-UHFFFAOYSA-N Glycine Chemical compound NCC(O)=O DHMQDGOQFOQNFH-UHFFFAOYSA-N 0.000 description 2
- 235000010469 Glycine max Nutrition 0.000 description 2
- 244000020551 Helianthus annuus Species 0.000 description 2
- 235000003222 Helianthus annuus Nutrition 0.000 description 2
- 102000004157 Hydrolases Human genes 0.000 description 2
- 108090000604 Hydrolases Proteins 0.000 description 2
- 108091092195 Intron Proteins 0.000 description 2
- 235000003228 Lactuca sativa Nutrition 0.000 description 2
- 240000008415 Lactuca sativa Species 0.000 description 2
- 108091026898 Leader sequence (mRNA) Proteins 0.000 description 2
- 235000007688 Lycopersicon esculentum Nutrition 0.000 description 2
- 241000219823 Medicago Species 0.000 description 2
- 235000017587 Medicago sativa ssp. sativa Nutrition 0.000 description 2
- 229920000168 Microcrystalline cellulose Polymers 0.000 description 2
- 108090000417 Oxygenases Proteins 0.000 description 2
- 102000004020 Oxygenases Human genes 0.000 description 2
- 101150029664 PELO gene Proteins 0.000 description 2
- 240000004713 Pisum sativum Species 0.000 description 2
- 235000010582 Pisum sativum Nutrition 0.000 description 2
- 108010059820 Polygalacturonase Proteins 0.000 description 2
- 240000003768 Solanum lycopersicum Species 0.000 description 2
- 244000061456 Solanum tuberosum Species 0.000 description 2
- 235000002595 Solanum tuberosum Nutrition 0.000 description 2
- 235000009337 Spinacia oleracea Nutrition 0.000 description 2
- 244000300264 Spinacia oleracea Species 0.000 description 2
- 229930006000 Sucrose Natural products 0.000 description 2
- CZMRCDWAGMRECN-UGDNZRGBSA-N Sucrose Chemical compound O[C@H]1[C@H](O)[C@@H](CO)O[C@@]1(CO)O[C@@H]1[C@H](O)[C@@H](O)[C@H](O)[C@@H](CO)O1 CZMRCDWAGMRECN-UGDNZRGBSA-N 0.000 description 2
- 229920004890 Triton X-100 Polymers 0.000 description 2
- 239000013504 Triton X-100 Substances 0.000 description 2
- DPXJVFZANSGRMM-UHFFFAOYSA-N acetic acid;2,3,4,5,6-pentahydroxyhexanal;sodium Chemical compound [Na].CC(O)=O.OCC(O)C(O)C(O)C(O)C=O DPXJVFZANSGRMM-UHFFFAOYSA-N 0.000 description 2
- 229960000723 ampicillin Drugs 0.000 description 2
- AVKUERGKIZMTKX-NJBDSQKTSA-N ampicillin Chemical compound C1([C@@H](N)C(=O)N[C@H]2[C@H]3SC([C@@H](N3C2=O)C(O)=O)(C)C)=CC=CC=C1 AVKUERGKIZMTKX-NJBDSQKTSA-N 0.000 description 2
- 230000004888 barrier function Effects 0.000 description 2
- WQZGKKKJIJFFOK-VFUOTHLCSA-N beta-D-glucose Chemical compound OC[C@H]1O[C@@H](O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-VFUOTHLCSA-N 0.000 description 2
- 230000008033 biological extinction Effects 0.000 description 2
- 238000004364 calculation method Methods 0.000 description 2
- 229910052799 carbon Inorganic materials 0.000 description 2
- 239000001569 carbon dioxide Substances 0.000 description 2
- 229910002092 carbon dioxide Inorganic materials 0.000 description 2
- 230000008618 cell wall macromolecule catabolic process Effects 0.000 description 2
- 210000000166 cellulosome Anatomy 0.000 description 2
- 230000008859 change Effects 0.000 description 2
- 238000012512 characterization method Methods 0.000 description 2
- 239000007979 citrate buffer Substances 0.000 description 2
- 230000000295 complement effect Effects 0.000 description 2
- 239000002299 complementary DNA Substances 0.000 description 2
- 239000000470 constituent Substances 0.000 description 2
- 230000003247 decreasing effect Effects 0.000 description 2
- 239000003599 detergent Substances 0.000 description 2
- 229960000633 dextran sulfate Drugs 0.000 description 2
- 235000021186 dishes Nutrition 0.000 description 2
- 238000006911 enzymatic reaction Methods 0.000 description 2
- 239000013604 expression vector Substances 0.000 description 2
- 239000012467 final product Substances 0.000 description 2
- 235000004426 flaxseed Nutrition 0.000 description 2
- 229940046240 glucomannan Drugs 0.000 description 2
- 150000004676 glycans Polymers 0.000 description 2
- 230000009931 harmful effect Effects 0.000 description 2
- 230000003301 hydrolyzing effect Effects 0.000 description 2
- 125000004356 hydroxy functional group Chemical group O* 0.000 description 2
- 238000003119 immunoblot Methods 0.000 description 2
- 238000000338 in vitro Methods 0.000 description 2
- NOESYZHRGYRDHS-UHFFFAOYSA-N insulin Chemical compound N1C(=O)C(NC(=O)C(CCC(N)=O)NC(=O)C(CCC(O)=O)NC(=O)C(C(C)C)NC(=O)C(NC(=O)CN)C(C)CC)CSSCC(C(NC(CO)C(=O)NC(CC(C)C)C(=O)NC(CC=2C=CC(O)=CC=2)C(=O)NC(CCC(N)=O)C(=O)NC(CC(C)C)C(=O)NC(CCC(O)=O)C(=O)NC(CC(N)=O)C(=O)NC(CC=2C=CC(O)=CC=2)C(=O)NC(CSSCC(NC(=O)C(C(C)C)NC(=O)C(CC(C)C)NC(=O)C(CC=2C=CC(O)=CC=2)NC(=O)C(CC(C)C)NC(=O)C(C)NC(=O)C(CCC(O)=O)NC(=O)C(C(C)C)NC(=O)C(CC(C)C)NC(=O)C(CC=2NC=NC=2)NC(=O)C(CO)NC(=O)CNC2=O)C(=O)NCC(=O)NC(CCC(O)=O)C(=O)NC(CCCNC(N)=N)C(=O)NCC(=O)NC(CC=3C=CC=CC=3)C(=O)NC(CC=3C=CC=CC=3)C(=O)NC(CC=3C=CC(O)=CC=3)C(=O)NC(C(C)O)C(=O)N3C(CCC3)C(=O)NC(CCCCN)C(=O)NC(C)C(O)=O)C(=O)NC(CC(N)=O)C(O)=O)=O)NC(=O)C(C(C)CC)NC(=O)C(CO)NC(=O)C(C(C)O)NC(=O)C1CSSCC2NC(=O)C(CC(C)C)NC(=O)C(NC(=O)C(CCC(N)=O)NC(=O)C(CC(N)=O)NC(=O)C(NC(=O)C(N)CC=1C=CC=CC=1)C(C)C)CC1=CN=CN1 NOESYZHRGYRDHS-UHFFFAOYSA-N 0.000 description 2
- 150000002500 ions Chemical class 0.000 description 2
- 229930027917 kanamycin Natural products 0.000 description 2
- 229960000318 kanamycin Drugs 0.000 description 2
- SBUJHOSQTJFQJX-NOAMYHISSA-N kanamycin Chemical compound O[C@@H]1[C@@H](O)[C@H](O)[C@@H](CN)O[C@@H]1O[C@H]1[C@H](O)[C@@H](O[C@@H]2[C@@H]([C@@H](N)[C@H](O)[C@@H](CO)O2)O)[C@H](N)C[C@@H]1N SBUJHOSQTJFQJX-NOAMYHISSA-N 0.000 description 2
- 229930182823 kanamycin A Natural products 0.000 description 2
- 235000021374 legumes Nutrition 0.000 description 2
- 239000002029 lignocellulosic biomass Substances 0.000 description 2
- 239000012978 lignocellulosic material Substances 0.000 description 2
- 238000012417 linear regression Methods 0.000 description 2
- 238000005259 measurement Methods 0.000 description 2
- 230000000813 microbial effect Effects 0.000 description 2
- 244000005700 microbiome Species 0.000 description 2
- 235000019813 microcrystalline cellulose Nutrition 0.000 description 2
- 239000008108 microcrystalline cellulose Substances 0.000 description 2
- 229940016286 microcrystalline cellulose Drugs 0.000 description 2
- 229960002715 nicotine Drugs 0.000 description 2
- ZHCAAFJSYLFLPX-UHFFFAOYSA-N nitrocyclohexatriene Chemical group [O-][N+](=O)C1=CC=C=C[CH]1 ZHCAAFJSYLFLPX-UHFFFAOYSA-N 0.000 description 2
- 239000001814 pectin Substances 0.000 description 2
- 235000010987 pectin Nutrition 0.000 description 2
- 101150108760 pelA gene Proteins 0.000 description 2
- 239000008363 phosphate buffer Substances 0.000 description 2
- 230000004481 post-translational protein modification Effects 0.000 description 2
- 230000001681 protective effect Effects 0.000 description 2
- 238000011002 quantification Methods 0.000 description 2
- 230000002829 reductive effect Effects 0.000 description 2
- 230000002441 reversible effect Effects 0.000 description 2
- 235000019515 salmon Nutrition 0.000 description 2
- 210000002966 serum Anatomy 0.000 description 2
- 238000002741 site-directed mutagenesis Methods 0.000 description 2
- 239000001488 sodium phosphate Substances 0.000 description 2
- 229910000162 sodium phosphate Inorganic materials 0.000 description 2
- 238000006467 substitution reaction Methods 0.000 description 2
- 239000005720 sucrose Substances 0.000 description 2
- 238000010998 test method Methods 0.000 description 2
- 210000001519 tissue Anatomy 0.000 description 2
- 238000012250 transgenic expression Methods 0.000 description 2
- HRXKRNGNAMMEHJ-UHFFFAOYSA-K trisodium citrate Chemical compound [Na+].[Na+].[Na+].[O-]C(=O)CC(O)(CC([O-])=O)C([O-])=O HRXKRNGNAMMEHJ-UHFFFAOYSA-K 0.000 description 2
- RYFMWSXOAZQYPI-UHFFFAOYSA-K trisodium phosphate Chemical compound [Na+].[Na+].[Na+].[O-]P([O-])([O-])=O RYFMWSXOAZQYPI-UHFFFAOYSA-K 0.000 description 2
- 201000008827 tuberculosis Diseases 0.000 description 2
- XLYOFNOQVPJJNP-UHFFFAOYSA-N water Chemical compound O XLYOFNOQVPJJNP-UHFFFAOYSA-N 0.000 description 2
- SNICXCGAKADSCV-JTQLQIEISA-N (-)-Nicotine Chemical compound CN1CCC[C@H]1C1=CC=CN=C1 SNICXCGAKADSCV-JTQLQIEISA-N 0.000 description 1
- IVZQNRPVAYGVJK-UHFFFAOYSA-N (2-hydroxy-5-nitrophenyl) butanoate Chemical compound CCCC(=O)OC1=CC([N+]([O-])=O)=CC=C1O IVZQNRPVAYGVJK-UHFFFAOYSA-N 0.000 description 1
- GHCZTIFQWKKGSB-UHFFFAOYSA-N 2-hydroxypropane-1,2,3-tricarboxylic acid;phosphoric acid Chemical compound OP(O)(O)=O.OC(=O)CC(O)(C(O)=O)CC(O)=O GHCZTIFQWKKGSB-UHFFFAOYSA-N 0.000 description 1
- IQUPABOKLQSFBK-UHFFFAOYSA-N 2-nitrophenol Chemical compound OC1=CC=CC=C1[N+]([O-])=O IQUPABOKLQSFBK-UHFFFAOYSA-N 0.000 description 1
- ZXVONLUNISGICL-UHFFFAOYSA-N 4,6-dinitro-o-cresol Chemical group CC1=CC([N+]([O-])=O)=CC([N+]([O-])=O)=C1O ZXVONLUNISGICL-UHFFFAOYSA-N 0.000 description 1
- 241000186361 Actinobacteria <class> Species 0.000 description 1
- 229920001817 Agar Polymers 0.000 description 1
- 241000222518 Agaricus Species 0.000 description 1
- 241000228212 Aspergillus Species 0.000 description 1
- 241000228215 Aspergillus aculeatus Species 0.000 description 1
- 241000228245 Aspergillus niger Species 0.000 description 1
- 241000271566 Aves Species 0.000 description 1
- 241000193830 Bacillus <bacterium> Species 0.000 description 1
- 241000606125 Bacteroides Species 0.000 description 1
- 241000219310 Beta vulgaris subsp. vulgaris Species 0.000 description 1
- 235000018185 Betula X alpestris Nutrition 0.000 description 1
- 235000018212 Betula X uliginosa Nutrition 0.000 description 1
- 108091003079 Bovine Serum Albumin Proteins 0.000 description 1
- 239000008001 CAPS buffer Substances 0.000 description 1
- BHPQYMZQTOCNFJ-UHFFFAOYSA-N Calcium cation Chemical compound [Ca+2] BHPQYMZQTOCNFJ-UHFFFAOYSA-N 0.000 description 1
- 244000025254 Cannabis sativa Species 0.000 description 1
- 229920002299 Cellodextrin Polymers 0.000 description 1
- 229920003043 Cellulose fiber Polymers 0.000 description 1
- 240000008886 Ceratonia siliqua Species 0.000 description 1
- 235000013912 Ceratonia siliqua Nutrition 0.000 description 1
- 241001112696 Clostridia Species 0.000 description 1
- 244000060011 Cocos nucifera Species 0.000 description 1
- 235000013162 Cocos nucifera Nutrition 0.000 description 1
- 108091026890 Coding region Proteins 0.000 description 1
- 241000008351 Conger japonicus Species 0.000 description 1
- YAHZABJORDUQGO-NQXXGFSBSA-N D-ribulose 1,5-bisphosphate Chemical compound OP(=O)(O)OC[C@@H](O)[C@@H](O)C(=O)COP(O)(O)=O YAHZABJORDUQGO-NQXXGFSBSA-N 0.000 description 1
- 238000001712 DNA sequencing Methods 0.000 description 1
- 230000006820 DNA synthesis Effects 0.000 description 1
- 244000000626 Daucus carota Species 0.000 description 1
- 235000002767 Daucus carota Nutrition 0.000 description 1
- KCXVZYZYPLLWCC-UHFFFAOYSA-N EDTA Chemical compound OC(=O)CN(CC(O)=O)CCN(CC(O)=O)CC(O)=O KCXVZYZYPLLWCC-UHFFFAOYSA-N 0.000 description 1
- 238000002965 ELISA Methods 0.000 description 1
- 102100031375 Endothelial lipase Human genes 0.000 description 1
- 239000004593 Epoxy Substances 0.000 description 1
- 241001522296 Erithacus rubecula Species 0.000 description 1
- 108090000371 Esterases Proteins 0.000 description 1
- 244000004281 Eucalyptus maculata Species 0.000 description 1
- 229920001917 Ficoll Polymers 0.000 description 1
- 108700039691 Genetic Promoter Regions Proteins 0.000 description 1
- WHUUTDBJXJRKMK-UHFFFAOYSA-N Glutamic acid Natural products OC(=O)C(N)CCC(O)=O WHUUTDBJXJRKMK-UHFFFAOYSA-N 0.000 description 1
- 239000004471 Glycine Substances 0.000 description 1
- 102000005744 Glycoside Hydrolases Human genes 0.000 description 1
- 108010031186 Glycoside Hydrolases Proteins 0.000 description 1
- 108010025076 Holoenzymes Proteins 0.000 description 1
- 102000004877 Insulin Human genes 0.000 description 1
- 108090001061 Insulin Proteins 0.000 description 1
- CKLJMWTZIZZHCS-REOHCLBHSA-N L-aspartic acid Chemical compound OC(=O)[C@@H](N)CC(O)=O CKLJMWTZIZZHCS-REOHCLBHSA-N 0.000 description 1
- WHUUTDBJXJRKMK-VKHMYHEASA-N L-glutamic acid Chemical compound OC(=O)[C@@H](N)CCC(O)=O WHUUTDBJXJRKMK-VKHMYHEASA-N 0.000 description 1
- 241000208682 Liquidambar Species 0.000 description 1
- 235000006550 Liquidambar Nutrition 0.000 description 1
- 108010052285 Membrane Proteins Proteins 0.000 description 1
- 102000018697 Membrane Proteins Human genes 0.000 description 1
- 241001465754 Metazoa Species 0.000 description 1
- 240000003433 Miscanthus floridulus Species 0.000 description 1
- 239000000020 Nitrocellulose Substances 0.000 description 1
- 108091028043 Nucleic acid sequence Proteins 0.000 description 1
- 241000283973 Oryctolagus cuniculus Species 0.000 description 1
- 108091005804 Peptidases Proteins 0.000 description 1
- 102000035195 Peptidases Human genes 0.000 description 1
- 108020005120 Plant DNA Proteins 0.000 description 1
- 241000209504 Poaceae Species 0.000 description 1
- 241000219000 Populus Species 0.000 description 1
- 239000004365 Protease Substances 0.000 description 1
- 240000004808 Saccharomyces cerevisiae Species 0.000 description 1
- 241000124033 Salix Species 0.000 description 1
- 241001558929 Sclerotium <basidiomycota> Species 0.000 description 1
- 241000209056 Secale Species 0.000 description 1
- 235000007238 Secale cereale Nutrition 0.000 description 1
- MTCFGRXMJLQNBG-UHFFFAOYSA-N Serine Natural products OCC(N)C(O)=O MTCFGRXMJLQNBG-UHFFFAOYSA-N 0.000 description 1
- VMHLLURERBWHNL-UHFFFAOYSA-M Sodium acetate Chemical compound [Na+].CC([O-])=O VMHLLURERBWHNL-UHFFFAOYSA-M 0.000 description 1
- 235000021536 Sugar beet Nutrition 0.000 description 1
- 108091036066 Three prime untranslated region Proteins 0.000 description 1
- 235000004240 Triticum spelta Nutrition 0.000 description 1
- 241000607598 Vibrio Species 0.000 description 1
- 238000002835 absorbance Methods 0.000 description 1
- 238000011481 absorbance measurement Methods 0.000 description 1
- 238000010521 absorption reaction Methods 0.000 description 1
- 239000008351 acetate buffer Substances 0.000 description 1
- 239000012445 acidic reagent Substances 0.000 description 1
- 230000002411 adverse Effects 0.000 description 1
- 239000008272 agar Substances 0.000 description 1
- 102000005840 alpha-Galactosidase Human genes 0.000 description 1
- 108010030291 alpha-Galactosidase Proteins 0.000 description 1
- 108010061261 alpha-glucuronidase Proteins 0.000 description 1
- 230000004075 alteration Effects 0.000 description 1
- 125000000539 amino acid group Chemical group 0.000 description 1
- 229940126575 aminoglycoside Drugs 0.000 description 1
- 238000000137 annealing Methods 0.000 description 1
- 230000000890 antigenic effect Effects 0.000 description 1
- 235000009582 asparagine Nutrition 0.000 description 1
- 229960001230 asparagine Drugs 0.000 description 1
- 235000003704 aspartic acid Nutrition 0.000 description 1
- 239000002585 base Substances 0.000 description 1
- 230000008901 benefit Effects 0.000 description 1
- OQFSQFPPLPISGP-UHFFFAOYSA-N beta-carboxyaspartic acid Natural products OC(=O)C(N)C(C(O)=O)C(O)=O OQFSQFPPLPISGP-UHFFFAOYSA-N 0.000 description 1
- 238000006065 biodegradation reaction Methods 0.000 description 1
- 230000004071 biological effect Effects 0.000 description 1
- 229960000074 biopharmaceutical Drugs 0.000 description 1
- 230000015572 biosynthetic process Effects 0.000 description 1
- 238000004061 bleaching Methods 0.000 description 1
- 229940098773 bovine serum albumin Drugs 0.000 description 1
- 229910001424 calcium ion Inorganic materials 0.000 description 1
- 238000004422 calculation algorithm Methods 0.000 description 1
- 238000011088 calibration curve Methods 0.000 description 1
- 125000004432 carbon atom Chemical group C* 0.000 description 1
- 239000001768 carboxy methyl cellulose Substances 0.000 description 1
- 150000001733 carboxylic acid esters Chemical class 0.000 description 1
- 239000008112 carboxymethyl-cellulose Substances 0.000 description 1
- OPNPQXLQERQBBV-UHFFFAOYSA-N carbromal Chemical compound CCC(Br)(CC)C(=O)NC(N)=O OPNPQXLQERQBBV-UHFFFAOYSA-N 0.000 description 1
- FYGDTMLNYKFZSV-ZWSAEMDYSA-N cellotriose Chemical compound O[C@@H]1[C@@H](O)[C@H](O)[C@@H](CO)O[C@H]1O[C@@H]1[C@@H](CO)O[C@@H](O[C@@H]2[C@H](OC(O)[C@H](O)[C@H]2O)CO)[C@H](O)[C@H]1O FYGDTMLNYKFZSV-ZWSAEMDYSA-N 0.000 description 1
- 238000005119 centrifugation Methods 0.000 description 1
- 239000002738 chelating agent Substances 0.000 description 1
- 239000003638 chemical reducing agent Substances 0.000 description 1
- 239000003795 chemical substances by application Substances 0.000 description 1
- 238000005352 clarification Methods 0.000 description 1
- 238000010367 cloning Methods 0.000 description 1
- 238000009833 condensation Methods 0.000 description 1
- 230000005494 condensation Effects 0.000 description 1
- IQFVPQOLBLOTPF-HKXUKFGYSA-L congo red Chemical compound [Na+].[Na+].C1=CC=CC2=C(N)C(/N=N/C3=CC=C(C=C3)C3=CC=C(C=C3)/N=N/C3=C(C4=CC=CC=C4C(=C3)S([O-])(=O)=O)N)=CC(S([O-])(=O)=O)=C21 IQFVPQOLBLOTPF-HKXUKFGYSA-L 0.000 description 1
- 238000001816 cooling Methods 0.000 description 1
- 235000018417 cysteine Nutrition 0.000 description 1
- 150000001945 cysteines Chemical class 0.000 description 1
- 210000000805 cytoplasm Anatomy 0.000 description 1
- 210000000172 cytosol Anatomy 0.000 description 1
- RGWHQCVHVJXOKC-SHYZEUOFSA-J dCTP(4-) Chemical compound O=C1N=C(N)C=CN1[C@@H]1O[C@H](COP([O-])(=O)OP([O-])(=O)OP([O-])([O-])=O)[C@@H](O)C1 RGWHQCVHVJXOKC-SHYZEUOFSA-J 0.000 description 1
- 238000012217 deletion Methods 0.000 description 1
- 230000037430 deletion Effects 0.000 description 1
- 238000013461 design Methods 0.000 description 1
- 238000001514 detection method Methods 0.000 description 1
- 238000011161 development Methods 0.000 description 1
- 230000018109 developmental process Effects 0.000 description 1
- 235000014113 dietary fatty acids Nutrition 0.000 description 1
- 235000019621 digestibility Nutrition 0.000 description 1
- 229940079919 digestives enzyme preparation Drugs 0.000 description 1
- 239000012153 distilled water Substances 0.000 description 1
- 238000001035 drying Methods 0.000 description 1
- 238000005516 engineering process Methods 0.000 description 1
- 230000007613 environmental effect Effects 0.000 description 1
- 230000006862 enzymatic digestion Effects 0.000 description 1
- 238000001952 enzyme assay Methods 0.000 description 1
- 108010038658 exo-1,4-beta-D-xylosidase Proteins 0.000 description 1
- 108010093305 exopolygalacturonase Proteins 0.000 description 1
- 238000000605 extraction Methods 0.000 description 1
- 239000000194 fatty acid Substances 0.000 description 1
- 229930195729 fatty acid Natural products 0.000 description 1
- 150000004665 fatty acids Chemical class 0.000 description 1
- 108010041969 feruloyl esterase Proteins 0.000 description 1
- 239000007850 fluorescent dye Substances 0.000 description 1
- 235000013373 food additive Nutrition 0.000 description 1
- 239000002778 food additive Substances 0.000 description 1
- 239000004459 forage Substances 0.000 description 1
- 238000009472 formulation Methods 0.000 description 1
- 235000015203 fruit juice Nutrition 0.000 description 1
- 235000012055 fruits and vegetables Nutrition 0.000 description 1
- 239000000446 fuel Substances 0.000 description 1
- 230000004927 fusion Effects 0.000 description 1
- 229930182830 galactose Natural products 0.000 description 1
- 239000007789 gas Substances 0.000 description 1
- 238000012818 gel-diffusion assay Methods 0.000 description 1
- 238000010359 gene isolation Methods 0.000 description 1
- 230000002068 genetic effect Effects 0.000 description 1
- 230000009229 glucose formation Effects 0.000 description 1
- 125000002791 glucosyl group Chemical group C1([C@H](O)[C@@H](O)[C@H](O)[C@H](O1)CO)* 0.000 description 1
- 235000013922 glutamic acid Nutrition 0.000 description 1
- 239000004220 glutamic acid Substances 0.000 description 1
- ZDXPYRJPNDTMRX-UHFFFAOYSA-N glutamine Natural products OC(=O)C(N)CCC(N)=O ZDXPYRJPNDTMRX-UHFFFAOYSA-N 0.000 description 1
- 230000013595 glycosylation Effects 0.000 description 1
- 238000006206 glycosylation reaction Methods 0.000 description 1
- 239000000122 growth hormone Substances 0.000 description 1
- 125000001475 halogen functional group Chemical group 0.000 description 1
- 239000011121 hardwood Substances 0.000 description 1
- 230000036541 health Effects 0.000 description 1
- 239000005556 hormone Substances 0.000 description 1
- 229940088597 hormone Drugs 0.000 description 1
- 230000008348 humoral response Effects 0.000 description 1
- 230000005847 immunogenicity Effects 0.000 description 1
- 238000007901 in situ hybridization Methods 0.000 description 1
- 239000003262 industrial enzyme Substances 0.000 description 1
- 239000003112 inhibitor Substances 0.000 description 1
- 230000002401 inhibitory effect Effects 0.000 description 1
- 230000005764 inhibitory process Effects 0.000 description 1
- 238000003780 insertion Methods 0.000 description 1
- 230000037431 insertion Effects 0.000 description 1
- 229940125396 insulin Drugs 0.000 description 1
- 230000000670 limiting effect Effects 0.000 description 1
- 235000019626 lipase activity Nutrition 0.000 description 1
- 239000002697 lyase inhibitor Substances 0.000 description 1
- 238000012423 maintenance Methods 0.000 description 1
- 238000007726 management method Methods 0.000 description 1
- 239000003550 marker Substances 0.000 description 1
- 235000013372 meat Nutrition 0.000 description 1
- 230000007246 mechanism Effects 0.000 description 1
- 230000001404 mediated effect Effects 0.000 description 1
- 239000012528 membrane Substances 0.000 description 1
- 229910021645 metal ion Inorganic materials 0.000 description 1
- 210000001724 microfibril Anatomy 0.000 description 1
- 238000003801 milling Methods 0.000 description 1
- 238000010369 molecular cloning Methods 0.000 description 1
- 239000000178 monomer Substances 0.000 description 1
- 239000006225 natural substrate Substances 0.000 description 1
- 230000007935 neutral effect Effects 0.000 description 1
- SNICXCGAKADSCV-UHFFFAOYSA-N nicotine Natural products CN1CCCC1C1=CC=CN=C1 SNICXCGAKADSCV-UHFFFAOYSA-N 0.000 description 1
- 229920001220 nitrocellulos Polymers 0.000 description 1
- 108020004707 nucleic acids Proteins 0.000 description 1
- 102000039446 nucleic acids Human genes 0.000 description 1
- 150000007523 nucleic acids Chemical class 0.000 description 1
- 235000016709 nutrition Nutrition 0.000 description 1
- 229920001542 oligosaccharide Polymers 0.000 description 1
- 150000002482 oligosaccharides Chemical class 0.000 description 1
- 210000003463 organelle Anatomy 0.000 description 1
- 239000005416 organic matter Substances 0.000 description 1
- DVDUMIQZEUTAGK-UHFFFAOYSA-N p-nitrophenyl butyrate Chemical compound CCCC(=O)OC1=CC=C([N+]([O-])=O)C=C1 DVDUMIQZEUTAGK-UHFFFAOYSA-N 0.000 description 1
- LVZSQWIWCANHPF-UHFFFAOYSA-N p-nitrophenyl palmitate Chemical compound CCCCCCCCCCCCCCCC(=O)OC1=CC=C([N+]([O-])=O)C=C1 LVZSQWIWCANHPF-UHFFFAOYSA-N 0.000 description 1
- 239000002245 particle Substances 0.000 description 1
- 108020004410 pectinesterase Proteins 0.000 description 1
- 230000002351 pectolytic effect Effects 0.000 description 1
- 239000000825 pharmaceutical preparation Substances 0.000 description 1
- 229940127557 pharmaceutical product Drugs 0.000 description 1
- 230000029553 photosynthesis Effects 0.000 description 1
- 238000010672 photosynthesis Methods 0.000 description 1
- 230000000243 photosynthetic effect Effects 0.000 description 1
- 230000003032 phytopathogenic effect Effects 0.000 description 1
- 230000008635 plant growth Effects 0.000 description 1
- 229920000728 polyester Polymers 0.000 description 1
- 238000006116 polymerization reaction Methods 0.000 description 1
- 239000001267 polyvinylpyrrolidone Substances 0.000 description 1
- 235000013855 polyvinylpyrrolidone Nutrition 0.000 description 1
- 229920000036 polyvinylpyrrolidone Polymers 0.000 description 1
- 244000144977 poultry Species 0.000 description 1
- 230000000135 prohibitive effect Effects 0.000 description 1
- 230000002035 prolonged effect Effects 0.000 description 1
- 238000002731 protein assay Methods 0.000 description 1
- 235000021251 pulses Nutrition 0.000 description 1
- 238000004451 qualitative analysis Methods 0.000 description 1
- 238000004445 quantitative analysis Methods 0.000 description 1
- 239000002994 raw material Substances 0.000 description 1
- 238000003259 recombinant expression Methods 0.000 description 1
- 230000006798 recombination Effects 0.000 description 1
- 238000005215 recombination Methods 0.000 description 1
- 238000007670 refining Methods 0.000 description 1
- 238000011160 research Methods 0.000 description 1
- PYWVYCXTNDRMGF-UHFFFAOYSA-N rhodamine B Chemical compound [Cl-].C=12C=CC(=[N+](CC)CC)C=C2OC2=CC(N(CC)CC)=CC=C2C=1C1=CC=CC=C1C(O)=O PYWVYCXTNDRMGF-UHFFFAOYSA-N 0.000 description 1
- 229940043267 rhodamine b Drugs 0.000 description 1
- 230000000630 rising effect Effects 0.000 description 1
- 108010038196 saccharide-binding proteins Proteins 0.000 description 1
- 229920006395 saturated elastomer Polymers 0.000 description 1
- 239000001632 sodium acetate Substances 0.000 description 1
- 235000017281 sodium acetate Nutrition 0.000 description 1
- FQENQNTWSFEDLI-UHFFFAOYSA-J sodium diphosphate Chemical compound [Na+].[Na+].[Na+].[Na+].[O-]P([O-])(=O)OP([O-])([O-])=O FQENQNTWSFEDLI-UHFFFAOYSA-J 0.000 description 1
- 238000002415 sodium dodecyl sulfate polyacrylamide gel electrophoresis Methods 0.000 description 1
- 239000012064 sodium phosphate buffer Substances 0.000 description 1
- 229940048086 sodium pyrophosphate Drugs 0.000 description 1
- 239000007787 solid Substances 0.000 description 1
- 241000894007 species Species 0.000 description 1
- 238000002798 spectrophotometry method Methods 0.000 description 1
- 238000001228 spectrum Methods 0.000 description 1
- 238000005507 spraying Methods 0.000 description 1
- 239000010902 straw Substances 0.000 description 1
- 239000006228 supernatant Substances 0.000 description 1
- 239000000725 suspension Substances 0.000 description 1
- 235000019605 sweet taste sensations Nutrition 0.000 description 1
- 230000002195 synergetic effect Effects 0.000 description 1
- 239000013077 target material Substances 0.000 description 1
- 235000019818 tetrasodium diphosphate Nutrition 0.000 description 1
- 239000001577 tetrasodium phosphonato phosphate Substances 0.000 description 1
- 239000004753 textile Substances 0.000 description 1
- 238000013518 transcription Methods 0.000 description 1
- 230000035897 transcription Effects 0.000 description 1
- 238000001890 transfection Methods 0.000 description 1
- 239000010875 treated wood Substances 0.000 description 1
- 229940038773 trisodium citrate Drugs 0.000 description 1
- 229960005486 vaccine Drugs 0.000 description 1
- 239000011782 vitamin Substances 0.000 description 1
- 235000013343 vitamin Nutrition 0.000 description 1
- 229940088594 vitamin Drugs 0.000 description 1
- 229930003231 vitamin Natural products 0.000 description 1
- 239000011800 void material Substances 0.000 description 1
- 235000014101 wine Nutrition 0.000 description 1
Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/82—Vectors or expression systems specially adapted for eukaryotic hosts for plant cells, e.g. plant artificial chromosomes (PACs)
- C12N15/8201—Methods for introducing genetic material into plant cells, e.g. DNA, RNA, stable or transient incorporation, tissue culture methods adapted for transformation
- C12N15/8214—Plastid transformation
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/82—Vectors or expression systems specially adapted for eukaryotic hosts for plant cells, e.g. plant artificial chromosomes (PACs)
- C12N15/8241—Phenotypically and genetically modified plants via recombinant DNA technology
- C12N15/8242—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits
- C12N15/8257—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits for the production of primary gene products, e.g. pharmaceutical products, interferon
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/24—Hydrolases (3) acting on glycosyl compounds (3.2)
- C12N9/2402—Hydrolases (3) acting on glycosyl compounds (3.2) hydrolysing O- and S- glycosyl compounds (3.2.1)
- C12N9/2405—Glucanases
- C12N9/2434—Glucanases acting on beta-1,4-glucosidic bonds
- C12N9/2437—Cellulases (3.2.1.4; 3.2.1.74; 3.2.1.91; 3.2.1.150)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/24—Hydrolases (3) acting on glycosyl compounds (3.2)
- C12N9/2402—Hydrolases (3) acting on glycosyl compounds (3.2) hydrolysing O- and S- glycosyl compounds (3.2.1)
- C12N9/2405—Glucanases
- C12N9/2434—Glucanases acting on beta-1,4-glucosidic bonds
- C12N9/2445—Beta-glucosidase (3.2.1.21)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/24—Hydrolases (3) acting on glycosyl compounds (3.2)
- C12N9/2402—Hydrolases (3) acting on glycosyl compounds (3.2) hydrolysing O- and S- glycosyl compounds (3.2.1)
- C12N9/2477—Hemicellulases not provided in a preceding group
- C12N9/248—Xylanases
- C12N9/2482—Endo-1,4-beta-xylanase (3.2.1.8)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12P—FERMENTATION OR ENZYME-USING PROCESSES TO SYNTHESISE A DESIRED CHEMICAL COMPOUND OR COMPOSITION OR TO SEPARATE OPTICAL ISOMERS FROM A RACEMIC MIXTURE
- C12P7/00—Preparation of oxygen-containing organic compounds
- C12P7/02—Preparation of oxygen-containing organic compounds containing a hydroxy group
- C12P7/04—Preparation of oxygen-containing organic compounds containing a hydroxy group acyclic
- C12P7/06—Ethanol, i.e. non-beverage
- C12P7/08—Ethanol, i.e. non-beverage produced as by-product or from waste or cellulosic material substrate
- C12P7/12—Ethanol, i.e. non-beverage produced as by-product or from waste or cellulosic material substrate substrate containing sulfite waste liquor or citrus waste
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y302/00—Hydrolases acting on glycosyl compounds, i.e. glycosylases (3.2)
- C12Y302/01—Glycosidases, i.e. enzymes hydrolysing O- and S-glycosyl compounds (3.2.1)
- C12Y302/01004—Cellulase (3.2.1.4), i.e. endo-1,4-beta-glucanase
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y302/00—Hydrolases acting on glycosyl compounds, i.e. glycosylases (3.2)
- C12Y302/01—Glycosidases, i.e. enzymes hydrolysing O- and S-glycosyl compounds (3.2.1)
- C12Y302/01008—Endo-1,4-beta-xylanase (3.2.1.8)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y302/00—Hydrolases acting on glycosyl compounds, i.e. glycosylases (3.2)
- C12Y302/01—Glycosidases, i.e. enzymes hydrolysing O- and S-glycosyl compounds (3.2.1)
- C12Y302/01021—Beta-glucosidase (3.2.1.21)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y302/00—Hydrolases acting on glycosyl compounds, i.e. glycosylases (3.2)
- C12Y302/01—Glycosidases, i.e. enzymes hydrolysing O- and S-glycosyl compounds (3.2.1)
- C12Y302/01091—Cellulose 1,4-beta-cellobiosidase (3.2.1.91)
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Genetics & Genomics (AREA)
- Chemical & Material Sciences (AREA)
- Organic Chemistry (AREA)
- Engineering & Computer Science (AREA)
- Zoology (AREA)
- Wood Science & Technology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- General Engineering & Computer Science (AREA)
- Biochemistry (AREA)
- General Health & Medical Sciences (AREA)
- Biotechnology (AREA)
- Biomedical Technology (AREA)
- Molecular Biology (AREA)
- Microbiology (AREA)
- Medicinal Chemistry (AREA)
- Cell Biology (AREA)
- Physics & Mathematics (AREA)
- Biophysics (AREA)
- Plant Pathology (AREA)
- Pharmacology & Pharmacy (AREA)
- Chemical Kinetics & Catalysis (AREA)
- General Chemical & Material Sciences (AREA)
- Enzymes And Modification Thereof (AREA)
- Breeding Of Plants And Reproduction By Means Of Culturing (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
Abstract
produção e uso de materiais de degradação de planta são aqui revelados materiais úteis para a degradação de biomassa de material de planta. em modalidades exemplares, o material de planta compreende uma ou mais enzimas que são expressas em plantas e/ ou bactérias. são especificamente aqui exemplificadas enzimas de degradação de plantas expressas em cloroplastos. as enzimas expressas em cloroplasto podem ser fornecidas como coquetéis para uso em conjunto com métodos convencionais de conversão de biomassa em biocombustíveis, por exemplo, etanol celulósico.
Description
MÉTODO DE DEGRADAÇÃO DE PLANTA, COQUETEL DE DEGRADAÇÃO DE PLANTAS, MATERIAL DE PLANTA HOMOGENEIZADO E COQUETEL DE ENZIMAS FUNDAMENTOS DA INVENÇÃO
A composição e a diversidade de biomassa para a produção de etanol celulósico exigem múltiplos sistemas enzimáticos, em concentrações muito elevadas, para liberar açúcares constituintes dos quais o etanol celulósico é feito. Todas as enzimas atualmente disponíveis para etanol celulósico são produzidas em sistemas de fermentação caros e são purificadas em um processo muito similar às substâncias biofarmacêuticas como insulina. Portanto, enzimas de grau de reagente para a produção de etanol são extremamente caras. Por exemplo, Bglicosidase, pectoliase e celulase são vendidas atualmente por Novozyme através do catálogo Sigma por U$ 124.000, U$ 412.000 e U$ 40.490 por kg, respectivamente. Essas enzimas são vendidas como formulações para biorrefinarias sem a revelação dos reais componentes enzimáticos. Portanto, o custo real para cada enzima, vendida em quantidades volumosas, não é disponível publicamente. A maioria das estimativas industriais para enzimas para a produção de etanol celulósico está na faixa de U$ 2 a U$ 3 por cerca de 3,78 litros, o que torna o custo do uso em grande escala proibitivo. A capacidade atual de sistemas de fermentação também constitui uma limitação importante. Com o aumento da demanda por enzimas e pela capacidade de produção limitada, o custo da enzima provavelmente aumentará ainda mais.
Uma limitação importante para a conversão dessa biomassa em etanol é o alto custo e as grandes quantidades de enzimas necessárias para a hidrólise. B-glicosidase, pectoliase e celulase são vendidas atualmente por Novozyme
Petição 870180130669, de 14/09/2018, pág. 17/24
2/85 ou outras indústrias através do catálogo de Sigma por U$ 124.000, U$ 412.000 e U$ 40.490 por kg, respectivamente. Portanto, o Departamento de Energia dos Estados Unidos (DOE) há muito identificou o custo das enzimas e seus altos níveis de carga necessários para a maioria das matériasprimas lignocelulósicas como uma das barreiras principais à produção de etanol celulósico. Atualmente, todas as enzimas disponíveis comercialmente são produzidas através de um processo de fermentação. Infelizmente, a construção e a manutenção do processo de produção de fermentação são muito caras, custando 500-900 milhões de dólares em investimentos prévios. Ainda não surgiu uma alternativa viável à tecnologia de fermentação para as enzimas industriais cruciais para a produção em massa, ainda proibitivamente caras. Esse vazio no mercado por um processo alternativo é preenchido diretamente por essa proposta.
BREVE DESCRIÇÃO DOS DESENHOS
Figura 1 (a) Representação esquemática da região trnl/trnA 16S do cloroplasto. Os transgenes foram inseridos na região espaçadora trnl/trnA no genoma do cloroplasto do tabaco. (b) Representação esquemática dos vetores de transformação do cloroplasto. 0 gene de interesse (GOT) é celD, celO, pelA, pelB, pelO, cutinase, lipY, egll, egl, swol, xyn2, axel ou bgll. Prrn, promotor de óperon de rRNA; aadA, o gene de aminoglicosídeo 3'-adeniltransferase confere resistência à espectinomicina; UTR 5', promotor e região 5' não traduzida do gene psbA; UTR 3', região não traduzida 3' do gene psbk. (c) Avaliação da integração do transgene e homoplasmia por Southern-blot de linhagens transplastômicas pelB, (d) pelD e (e) celD hibridizadas com
3/85 a sonda da sequência flanqueadora (1, não transformadas; 2 a 4, linhagens transplastômicas). (f) Fenótipos de linhagens não transformadas (UT) e transplastômicas desenvolvidas em estufa que mostram crescimento normal.
Figura 2 Análise Western blot e quantificação de linhagens transplastômicas. Western blot de linhagens transplastômicas que expressam (a) PelB ou (b) PelD. UT: não transformadas, folhas maduras colhidas às 10 da manhã, da tarde, 6 da tarde e 10 da tarde; 5 ng, 10 ng e 25 ng: proteína PelA purificada, folhas jovens, maduras e velhas.
(c) Unidades de enzima de PelB e PelD (c) ou CelD (d) de um g ou 100 mg de folha de idades ou momentos de colheita diferentes.
Figura 3 Efeito de substrato, pH, temperatura e cofatores sobre a atividade enzimática de jcpPelB, rPelB, cpPelD, rPelD, rCelD e cpCelD. (a) Efeito de concentrações crescentes de
PGA sobre a atividade de pectato liases. (b)
Efeito do pH sobre atividade de pectato liases na ausência de CaCl2 e (c) na presença de CaCl2.
Os tampões foram os seguintes:
mM de tampão fosfato (pH 6-7), tampão de Tris-HCl (pH 8), tampão de glicina/NaOH (pH 9) e tampão CAPS (pH 10,0) com 4 pg de TSP de PelB e PelD de planta e de E. coli. 0 pH ótimo foi determinado a 40°C usando 2,5 mg/ml de PGA como substrato. (d) Efeito da temperatura (30-70°C) sobre a atividade enzimática em pH
8,0 na ausência de CaCl2 e (e) na presença de CaCl2. (f)
Otimização do pH para atividade de cpCelD e rCelD usando CMC (2%) a 60°C por 30 minutos. A atividade relativa (%) foi medida com referência à atividade máxima obtida com 25 pg/ml para cpCelD e 10 pg/ml para rCelD. (g) Efeito de
4/85 temperaturas crescentes sobre a atividade relativa de cpCelD e rCelD usando CMC (2%) por 30 minutos em pH 6,0. A atividade relativa (%) foi medida com referência à atividade máxima obtida com 25 pg/ml para cpCelD e 10 pg/ml para rCelD. (h) Aumento da atividade de cpCelD (reação de 25 pg de TSP/ml) usando 10 mM de CaCl2 e 20 pg/ml de BSA individualmente ou em combinação com 50 mM de acetato de sódio durante a hidrólise enzimática prolongada. A hidrólise foi realizada até 36 horas a 60°C, pH 6,0, na presença de CMC (2%).
Figura 4 Enzimas derivadas de E. coli vs. cloroplasto em diferentes concentrações de proteína de extratos brutos, (a) Cinética enzimática de cpCelD e rCelD usando substrato de carboximetil celulose (2%). A mistura de reação continha concentrações crescentes de cpCelD e rCelD TSP (pg/ml) com 10 mM de CaCl2 e 50 mM de tampão de acetato de sódio, pH 6,0. A hidrólise enzimática foi realizada por 30 minutos a 60°C. O detalhe da Figura mostra o ponto de saturação da cinética enzimática para quantidade TSP de cpCelD (pg/ml) em direção a CMC (2%). Os tubos de Eppendorf com mistura de reação mostrados no detalhe representam, 1 planta não transformada, 2 e 3 TSP de 10 pg de rCelD e cpCelD. (b) Efeito de cpPelB, cpPelD, rPelB e rPelD sobre a hidrólise de substrato de 5,0 mg/ml de poligalacturonato de sódio. A mistura de reação continha concentrações crescentes de cpPelB, cpPelD, rPelB e rPelD (pg/ml) em 20 mM de tampão de Tris-HCl (pH 8,0). Poligalacturonato de sódio (Sigma) foi medido usando o método de DNS e medido a partir do gráficopadrão de ácido D-galacturônico. A hidrólise enzimática foi realizada por 2 horas a 40°C em um misturador rotatório a
5/85
150 rpm.
Figura 5 Coquetéis de enzimas para papel de filtro, madeira processada e casca de cítricos, (a) A atividade no papel de filtro foi determinada usando uma tira de papel de filtro Whatman N° 1 (ensaio de 50 mg/ml) em pH 5,5 e 50°C. Diferentes combinações de extratos brutos contendo rEgl (100 pg/ml), rBgll (200 pg/ml), rSwol (120 pg/ml), rCelO (100 pg/ml) e cpCelD (100 pg/ml) foram usadas no coquetel. As amostras foram incubadas com 10 mM de CaCl2, 20 pg de BSA em um misturador rotatório a 150 rpm por 24 horas, (b) A hidrólise da amostra de madeira processada (reação de 200 mg/5 ml) foi feita pela utilização de um coquetel de extratos brutos de cpPelB (250 pg/ml) , cpPelD (250 pg/ml) (em pH 8,0,), cpCelD (200 pg/ml), cpXyn2 (200 pg/ml), rEgl (100 pg/ml), rBgll (200 pg/ml), rSwol (120 pg/ml), rCelO (100 pg/ml), rAxel (100 pg/ml), rPelA (200 pg/ml), rCutinase (50 pg/ml), rLipY (100 pg/ml). A mistura de reação contendo 10 mM de CaCl2, 20 pg/ml de BSA foi incubada por 36 horas em um misturador rotatório a 150 rpm; pH (5,5-8,0) e temperatura (40°C-50°C) foram ajustados com base nas condições ótimas. A análise do ponto final da liberação de equivalentes de glicose foi determinada usando o método de DNS. (c) A hidrólise de casca de laranja Valência (reação de 200 mg/5 ml) foi feita usando um coquetel de extratos brutos de cpPelB (250 pg/ml) , cpPelD (250 pg/ml) cpCelD (100 pg/ml) e cpXyn2 (100 pg/ml), rEgl (100 pg/ml), rBgll(200 pg/ml), rSwol(120 pg/ml), rCelO (100 pg/ml) e cpCelD (100 pg/ml), rAxe2 (100 pg/ml), rCutinase (50 pg/ml), rLipY (100 pg/ml), rPelA (200 pg/ml). A análise do produto final de açúcar redutor foi determinada usando
6/85 reagente de DNS 31 e D-glicose e ácido D-galacturônico como padrões. Ampicilina e canamicina a 100 pg/ml foram adicionadas para evitar qualquer crescimento microbiano durante hidrólise. As amostras foram incubadas com 10 mM de CaCl2, 20 pg/ml de BSA em um misturador rotatório a 150 rpm por 24 horas; o pH (5,5-8,0) e a temperatura (40°C-50°C) foram ajustados com base em condições ótimas. Em todos os experimentos, ensaios de controle continham substrato sem enzima ou enzima sem substrato. Todos os experimentos e ensaios foram realizados em triplicata.
Figura 6 Geração de cultivares comerciais transplastômicos de tabaco (A) Enraizamento de broto de CelD LAMD (B) plantas transplastômicas de CelD LAMD que crescem na estufa (C) plantas transplastômicas de CelD LAMD que mostram floração normal (D) transformante primário de CelD TN90 (E) Segunda rodada de regeneração para CelD TN90 (F) Enraizamento de PelB TN90 (G-I) Primeira, segunda e terceira rodada de regeneração para PelB LAMD (J) Enraizamento de broto de PelD LAMD (K) plantas transplastômicas PelD LAMD que crescem em estufa (L) planta transplastômica PelD LAMD que mostra floração normal (M) Enraizamento de broto egl LAMD (N) planta transplastômica egl LAMD que cresce em potes.
Figura 7 Confirmação de homoplasmia por southern-blots usando sonda flanqueadora de tabaco (A) CelD LAMD (B) PelB LAMD (C) PelB TN90 (D) PelD LAMD e (E) egl LAMD (UT: Planta não transformada; Números: Linhagens transplastômicas e B: Branco).
Figura 8 Atividade enzimática de pectato liase B e D em cultivares de tabaco Petit Havana, TN90 e LAMD (A) PelB
7/85 (B) PelD. Observação: o material de folha usado para a análise da atividade enzimática para cultivares de tabaco TN90 e LAMD foi colhido de plantas in vitro, enquanto o material de folha para Petit Havana é da estufa. Na medida em que o transgene é controlado por psbA, com a luz e elementos reguladores do desenvolvimento, espera-se que os níveis de expressão em cultivares comerciais sejam maiores quando transferidos para a estufa.
A Figura 9 mostra informação de sequência de alguns exemplos de genes de composto de degradação de plantas.
DESCRIÇÃO GERAL
Algumas modalidades da invenção abordam os problemas principais discutidos acima por produção de todas as enzimas necessárias em plantas ou bactérias ou uma combinação de ambas, aliviando dramaticamente, dessa forma, o custo da fermentação e purificação. De acordo com uma modalidade, a invenção pertence a um método de degradação de uma amostra de biomassa de planta de modo a liberar açúcares fermentáveis nessa amostra. O método envolve a obtenção de um coquetel de degradação de plantas que compreende pelo menos dois extratos celulares, cada extrato celular possuindo um composto ativo de degradação de plantas que foi recombinantemente expresso em células das quais cada um dos referidos extratos celulares é derivado. Os (pelo menos) dois extratos celulares são extratos de planta ou extratos bacterianos, ou uma combinação de ambos. 0 coquetel de degradação de plantas é misturado com a amostra de biomassa para a liberação de açúcares fermentáveis. Em uma modalidade mais específica, o coquetel de degradação de plantas inclui extratos celulares que
8/85 incluem enzimas de degradação de plantas como, por exemplo, celulase, ligninase, beta-glicosidase, hemicelulase, xilanase, alfa-amilase, amiloglicosidase, pectato liase, lipase, alfa-amilase maltogênica, pectoliase, ou compostos que facilitam o acesso dessas enzimas, ou os denominados compostos de degradação de plantas acessórios, que incluem, sem limitação, cutinase ou expansina (por exemplo, swolenina). Os inventores verificaram que esses compostos de degradação de plantas acessórios servem para facilitar a ação de enzimas de degradação de plantas que elevam sinergicamente a quantidade de açúcares fermentáveis produzida para certa amostra de biomassa.
Extratos de células de planta incluirão, na maioria dos casos, uma quantidade de ribulose-1,5-bisfosfato carboxilase oxigenase (rubisco) das células de plantas das quais os extratos de células de planta são derivados. Rubisco é a enzima mais prevalente no planeta, sendo responsável por 30-50% da proteína solúvel total no cloroplasto; ela fixa dióxido de carbono, mas a atividade de oxigenase limita severamente a fotossíntese e produtividade do cultivo (Ogren, W.L. (2003) Photosynth. Res. 76, 53-63, 2. Spreitzer, R.J. e Salvucci, M.E. (2002) Annu. Rev. Plant Biol. 53, 449-475). Rubisco consiste em oito subunidades grandes (LSUs) e oito subunidades pequenas (SSUs) . A SSU é importada do citosol, e ambas as subunidades passam por várias modificações pós-tradução antes da montagem em holoenzima funcional (Houtz, R.L. e Portis, A.R. (2003) Arch. Biochem. Bíophys. 414, 150-158).
O uso de transformação genética de plantas geralmente não é considerado uma alternativa viável aos processos
9/85 convencionais de fermentação para a produção de enzimas de degradação de plantas à luz do fato de que as proteínas expressas seriam deletérias à vida e ao crescimento da planta. Os inventores esforçaram-se para criar um método de expressão de enzimas de degradação de plantas de tal forma que não rompa a célula da planta. Os inventores acreditam que a presente invenção seja a primeira demonstração da expressão viável de uma enzima de degradação de plantas em plantas. Os inventores perceberam que a expressão de muitas enzimas de degradação de plantas pode ser expressa em cloroplastos, sem efeitos adversos na planta. Os cloroplastos parecem isolar a célula da planta de danos decorrentes das enzimas. Embora a expressão em cloroplastos seja aqui exemplificada, a menos que especificamente definido, as modalidades da presente invenção não devem ser consideradas como estando limitadas à expressão em cloroplasto de enzimas de degradação de plantas. Algumas modalidades estão relacionadas a uma combinação de extratos de plantas e bacterianos de células criadas geneticamente para expressar recombinantemente um composto de degradação de plantas(s).
O termo expresso recombinantemente, como aqui usado, refere-se à produção de um polipeptídeo a partir de um polinucleotídeo que é heterólogo à célula na qual o polinucleotídeo foi transfectado. A expressão recombinante pode resultar de polinucleotídeos heterólogos que são transformados estavelmente no genoma da célula, ou no genoma da organela da célula, ou que simplesmente estão presentes na célula por meio de um evento de transfecção.
O termo cloroplasto é interpretado de forma ampla
10/85 para cobrir todos os plastídios, incluindo proplastídios, etioplastos, cloroplastos maduros e cromoplastos.
Um sistema de celulase abrangente consiste em endoglucanases, celobiohidrolases e beta-glicosidases. As celobiohidrolases e endoglucanases funcionam sinergicamente para degradar a celulose em celobiose, que é então hidrolisada em glicose pelas beta-glicosidases. A atividade de celobiase, ou beta-glicosidase, é responsável pela formação de glicose a partir de celobiose e tem um papel importante na degradação de celulose por liberação da inibição do produto final (celobiose). As sequências gênicas para a maioria dessas enzimas, de diferentes microorganismos, foram depositadas em bases de dados públicas.
Pectinas, ou substâncias pécticas, são nomes coletivos para uma mistura de polissacarídeos heterogêneos, ramificados e altamente hidratados presentes como um dos componentes principais nas paredes de células de plantas. Esses polissacarídeos compreendem principalmente açúcares neutros, por exemplo, arabinano, galactano, andarabino galactano. Preparações de enzimas pectolíticas ativas possuem as seguintes enzimas: duas alfa-L-ramnohidrolases, poligalacturonase, pectina metilesterase, endo-pectato liase (pectina-transeliminase), pectina liase e um pequeno percentual de xilanase. A sequência de nucleotídeos para enzimas de degradação de pectina, xilanases, celulases, estão disponíveis em bases de dados públicas. Veja o Exemplo 9 dessa especificação para uma discussão sobre sequências.
inventor percebeu que as necessidades de enzima são
11/85 muito diferentes para cada tipo de biomassa usada na produção de etanol celulósico. Consequentemente, certas modalidades da presente invenção estão relacionadas aos coquetéis de enzimas obtidos a partir da expressão em plantas e/ou expressão em bactérias que os inventores desenvolveram como sendo particularmente eficazes para o material de biomassa visado.
As fontes de biomassa que podem ser degradadas para a produção de etanol de acordo com os ensinamentos aqui apresentados incluem, sem limitação, grãos como, por exemplo, milho, trigo, centeio, cevada e os resíduos de grãos obtidos a partir destes (primariamente material residual como, por exemplo, talos, folhas e cascas), beterraba, cana de açúcar, gramas como, por exemplo, capimelefante e Miscanthus, madeiras como, por exemplo, árvores de álamo, eucalipto, salgueiro, liquidâmbar e robínia, entre outras, e resíduos florestais (por exemplo, lascas e serragem de serrarias) . Outras biomassas podem incluir, sem limitação, frutas, incluindo cítricos, e resíduos destes, por exemplo, casca de cítricos.
Ao longo deste documento, tabaco é citado como uma planta exemplar para a expressão de enzimas de degradação de plantas. No entanto, a menos que especificamente definido, as modalidades da invenção não devem ser consideradas como limitadas à expressão em tabaco. Os ensinamentos sobre expressão gênica aqui apresentados podem ser aplicados em uma ampla gama de plantas, que incluem, sem limitação, tabaco; alface, espinafre; girassol; cultivos de leguminosas como, por exemplo, soja, feijão, ervilhas e alfafa; tomate; batata; cenoura; beterraba;
12/85 cultivos de crucíferas; cultivos de fibras como, por exemplo, algodão; cultivos hortícolas como, por exemplo, gérbera e crisântemo; colza; e linhaça.
Em uma modalidade, genes de Aspergillus niger, Aspergillus aculeatus, Trichoderma reesei e/ou Clostridium thermocellum que codificam classes diferentes de enzimas são isolados usando iniciadores gene-específicos. A fim de expressar classes diferentes de genes em um cloroplasto de interesse, as estratégias seguintes são usadas. O vetor de cloroplasto contém sequências flanqueadoras do genoma do cloroplasto para facilitar a recombinação homóloga. Em uma modalidade, genes estranhos são integrados individualmente na região espaçadora do genoma do cloroplasto. A sequência codificadora de diferentes enzimas pode ser regulada por sequências reguladoras apropriadas. Plasmídeos recombinantes serão bombardeados em tabaco para obter plantas transplastômicas.
Em uma modalidade específica, folhas de tabaco em pó são usadas como fontes de enzima para avaliação comercial de produção de etanol a partir de uma fonte de biomassa. Em uma modalidade mais específica, a fonte de biomassa é um grão como, por exemplo, milho, uma grama ou resíduos de cítricos.
Para cloroplastos que são transformados, percebeu-se que a obtenção de homoplasmia com relação aos cloroplastos transgênicos é desejada. A integração do transgene e homoplasmia são confirmadas por PCR e análise Southernblot, respectivamente. A Expressão dos transgenes é confirmada por análise western blot e quantificada por ELISA. 0 extrato de proteína de plantas transplastômicas de
13/85 tabaco é testado quanto à sua habilidade para degradar biomassa de resíduos de cítricos. Com base nos resultados,
| mais classes de | enzimas | são | adicionadas | para aumentar a | |
| degradação da | biomassa | de | planta | em | açúcares para |
| fermentação em | etanol. | Cada | planta | de | tabaco, criada |
| geneticamente para produzir | uma enzima, | será capaz de |
produzir um milhão de sementes, para facilitar o aumento de escala até 100 acres, se necessário. Material homogeneizado de planta, por exemplo, folhas de tabaco em pó ou extratos de planta, ou enzimas purificadas de material de planta, é usado como a fonte de enzima para a avaliação comercial da produção de etanol a partir de resíduos de cítricos.
Embora os métodos atuais envolvam a colocação de um gene estranho no núcleo da célula de planta, CT transforma o genoma dos aproximadamente 100 cloroplastos que estão dentro de cada tabaco célula de planta. Cada cloroplasto da planta de tabaco contém cerca de 100 cópias do material genético do cloroplasto e, portanto, a quantidade de proteína (nesse caso, proteínas de enzima usadas para degradar a biomassa em açúcar para a produção de etanol) é aumentada exponencialmente. Esta é a razão primária pela qual a produção em volume maciço de enzimas de degradação da parede celular para a produção de etanol celulósico tem o custo tão compensador. Em segundo, o tabaco possui grande volume de biomassa (40 toneladas métricas de folhas por acre) e pode ser colhido várias vezes durante certa estação estivai de crescimento na Flórida. E, como mencionado previamente, é fácil plantar 100 acres a partir de uma única planta de tabaco. Por último, como os cloroplastos são herdados pela mãe, eles não são funcionais no pólen da
14/85 planta de tabaco.
De acordo com uma modalidade, a invenção pertence a um método de degradação de uma amostra de biomassa de planta para a liberação de açúcares fermentáveis. O método inclui a obtenção de um coquetel de degradação de plantas que possui pelo menos um genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica celulase, ligninase, beta-glicosidase, hemicelulase, xilanase, alfaamilase, amiloglicosidase, pectato liase, cutinase, lipase ou pectoliase, ou uma combinação destas; e em que o referido material de planta possui celulase, ligninase, beta-glicosidase, hemicelulase, xilanase, alfa-amilase, amiloglicosidase, pectato liase, cutinase, lipase, alfaamilase maltogênica, pectoliase ou expansina, ou uma combinação destas, que foi expressa em uma planta da qual o referido material de planta é derivado; e mistura do referido material de degradação de planta com a referida amostra de biomassa. Em uma modalidade mais específica, a enzima ou combinação de enzimas pertence a mais de 0,1 por cento da proteína total no material de planta.
De acordo com outra modalidade, a invenção pertence a um método de produção de um material de degradação de biomassa de planta suficiente para a liberação de açúcares fermentáveis, o método incluindo a produção de pelo menos uma planta que compreende cloroplastos que expressam
| celulase, | ligninase, beta-glicosidase, hemicelulase, |
| xilanase, | alfa-amilase, amiloglicosidase, pectato liase, |
| cutinase, | lipase, alfa-amilase maltogênica, pectoliase ou |
| expansina, | ou uma combinação destas; a colheita da referida |
| planta; e | o processamento da referida planta para produzir |
15/85 uma fonte de enzima adequada para mistura e degradação de uma amostra de biomassa. Em uma modalidade específica, a planta é tabaco; alface, espinafre; girassol; cultivos de fibras como, por exemplo, algodão; cultivos hortícolas como, por exemplo, gérbera e crisântemo; cultivos de leguminosas como, por exemplo, soja, feijão, ervilhas, e alfafa; tomate; batata; beterraba; cultivos de crucíferas, incluindo colza; e linhaça. Em uma modalidade mais específica, a planta é tabaco.
Um aspecto da invenção é o fornecimento de uma fonte abundante barata de enzima para a degradação de biomassa. Consequentemente, o material de planta ou bacteriano no qual os compostos de degradação de plantas foram expressos pode ser processado por secagem e pulverização da planta ou uma porção desta. Em outra modalidade, extratos líquidos brutos são produzidos a partir do material de planta e/ou bacteriano. Em modalidades alternativas, o material de degradação de planta pode ser enzimas que foram purificadas total ou parcialmente da planta e/ou bactérias nas quais são expressas. No entanto, o fornecimento do material de degradação de planta como uma forma seca ou como extrato bruto do material de planta e/ou bacteriano evita a necessidade de etapas de purificação demoradas e potencialmente caras. Dessa forma, o material de planta possui uma vida útil mais longa e pode facilmente ser misturado com a amostra de biomassa de planta de acordo com processos convencionais de degradação e fermentação de plantas.
Em uma modalidade específica, o método de produção de a planta envolve a produção de uma primeira planta com
16/85 cloroplastos transformada para expressar uma primeira enzima e uma segunda planta com cloroplastos transformada para expressar uma segunda enzima. O material de planta da
| primeira | e da segunda plantas pode ser combinado para |
| produzir | uma amostra de degradação de planta que inclui |
| mais de | uma enzima de degradação de plantas. Em uma |
modalidade mais específica, a invenção pertence a um método de produção de uma planta que envolve pelo menos dois dos seguintes: produção de uma primeira planta que compreende cloroplastos que expressam celulase, produção de uma segunda planta que compreende cloroplastos que expressam ligninase, produção de uma terceira planta que compreende cloroplastos que expressam beta-glicosidase; produção de uma quarta planta que compreende cloroplastos que expressam hemicelulase; produção de uma quinta planta que compreende cloroplastos que expressam xilanase; produção de uma sexta planta que compreende cloroplastos que expressam alfaamilase; produção de uma sétima planta que compreende cloroplastos que expressam amiloglicosidase; produção de uma oitava planta que compreende cloroplastos que expressam pectato liase; produção de uma nona cloroplastos que expressam cutinase;
planta que compreende cloroplastos planta que compreende produção de uma décima que expressam lipase;
produção de uma décima primeira planta que compreende cloroplastos que expressam alfa-amilase maltogênica, produção de uma décima segunda planta que compreende cloroplastos que expressam pectoliase e/ou uma décima terceira planta que compreende cloroplastos que expressam expansina (por exemplo, swolenina).
Como citado acima, os inventores reconheceram que, de
17/85 acordo com certas modalidades, enzimas derivadas de plantas são aumentadas com enzimas de degradação de plantas expressas recombinantemente em bactérias.
Dessa forma, um coquetel de degradação de plantas pode incluir enzimas expressas recombinantemente em plantas e enzimas que são expressas recombinantemente em bactérias, como, por exemplo, sem limitação, E. coli.
De acordo com uma modalidade adicional, a invenção pertence a um material de planta útil para a degradação de uma biomassa de planta, o material incluindo pelo menos um genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica celulase, ligninase, betaglicosidase, hemicelulase, xilanase, alfa-amilase, amiloglicosidase, pectato liase, cutinase, lipase, alfaamilase maltogênica, pectoliase ou expansina, ou uma compreende celulase, hemicelulase, xilanase, pectato liase, cutinase, pectoliase ou expansina, que o referido material de planta ligninase, alfa-amilase, beta-glicosidase, amiloglicosidase, lipase, alfa-amilase maltogênica, ou uma combinação destas. Em uma modalidade mais específica, o material de planta inclui pelo menos dois dos seguintes: um primeiro genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica celulase, um segundo genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica ligninase, um terceiro genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica beta-glicosidase; um quarto genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica hemicelulase; um quinto genoma do
18/85
| cloroplasto | ou | segmento | do | genoma | que | possui | um | gene |
| heterólogo | que | codifica | xilanase; | um | sexto genoma do | |||
| cloroplasto | ou | segmento | do | genoma | que | possui | um | gene |
| heterólogo | que | codifica alfa- | amilase; | um | sétimo | genoma do | ||
| cloroplasto | ou | segmento | do | genoma | que | possui | um | gene |
heterólogo que codifica amiloglicosidase; um oitavo genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica pectato liase; um nono genoma do cloroplasto ou segmento do genoma da planta que possui um gene heterólogo que codifica cutinase; um décimo genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica lipase; um décimo primeiro genoma do cloroplasto ou segmento do genoma que codifica alfaamilase maltogênica, um décimo segundo genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica pectoliase e um décimo terceiro genoma do cloroplasto ou segmento do genoma que possui um gene heterólogo que codifica expansina (por exemplo, swolenina).
De acordo com outra modalidade, a invenção pertence a uma planta que possui uma célula de planta que possui uma quantidade acima da quantidade natural de celulase, ligninase, beta-glicosidase, hemicelulase, xilanase, alfaamilase, amiloglicosidase, pectato liase, cutinase, lipase pectoliase ou expansina, ou uma combinação destas; e em que o referido material de planta compreende uma enzima celulase, xilanase, cutinase, ligninase, beta-glicosidase, hemicelulase, alfa-amilase, amiloglicosidase, pectato liase, lipase, pectoliase ou expansina ativa, ou uma combinação destas. Em uma modalidade mais específica, a
19/85 enzima ou combinação de enzimas representa mais de 0,1 por cento da proteína total da célula. Em uma modalidade ainda mais específica, a enzima ou combinação de enzimas representa mais de 1,0 por cento da proteína total na célula.
Em uma modalidade adicional, a invenção pertence a uma composição derivada de planta que compreende celulase, ligninase, beta-glicosidase, hemicelulase, xilanase, alfaamilase, amiloglicosidase, pectato liase, cutinase, lipase, alfa-amilase maltogênica, pectoliase e/ou swolenina, e uma quantidade de rubisco. Em uma modalidade específica, a proporção de rubisco para enzima varia de 99:1 a 1:99.
Em uma modalidade adicional, a invenção pertence a cultivares comerciais que expressam recombinantemente um ou mais compostos de degradação de plantas. Cultivares comerciais de tabaco como, por exemplo, sem limitação, LAMD e TN90, produzem substancialmente mais material de folha do que cultivares experimentais. No entanto, cultivares comerciais são mais sensíveis à introdução de genes estranhos. Surpreendentemente, o inventor, através de experimentação e erro significativos, foi capaz de transfectar com sucesso células e induzir a expressão de compostos de degradação de plantas em cultivares comerciais.
Exemplos
Exemplo 1: Montagem de construções de expressão em cloroplasto
Para a integração de transgenes, foi usada uma região espaçadora ativa em termos de transcrição entre os genes trnl e trnA (Fig. Ia) . PCR resultou na amplificação de
20/85 vários genes de interesse (GOI), incluindo endoglucanase (celD), exoglucanase (ceio) de DNA genômico de Clostridium thermocellum, lipase (lipY) de DNA genômico de
Mycobacterium tuberculosis, pectato liases (pelA, pelB, pelD) e cutinase de Fusarium solani. Usando um novo método baseado em PCR, as sequências codificadoras de GOI, incluindo endoglucanases (egrll e egrl) , swolenina (swol similar às expansinas), xilanase (xyn2) , acetil xilana esterase (axel) e beta-glicosidase (bgrll) , foram clonadas sem íntrons (que variam de 1-5) de DNA genômico de
Trichoderma ressei. Vetores de transformação do cloroplasto de tabaco foram feitos com cada GOI (Fig. lb) . Todos os vetores de cloroplasto incluíam as sequências flanqueadoras 16S trnl/trnA para recombinação homóloga nas regiões de repetição invertidas do genoma do cloroplasto e o gene aadA que confere resistência à espectinomicina. O gene aadA foi dirigido pelo promotor constitutivo de óperon de rRNA com sítio de ligação de ribossomo GGAGG. 0 GOI foi dirigido pelo promotor psbA e UTR 5' a fim de obter níveis elevados de expressão. A UTR 3' localizada na extremidade 3' do GOI conferia estabilidade ao transcrito.
Exemplo 2: Geração e caracterização de tabaco transplastômico que expressa pectato liases (PelB & PelD) e endoglucanase (CelD)
Plantas transplastômicas de tabaco foram obtidas como descrito previamente 28,29 . Análise Sou thern-blot foi realizada para confirmar a integração sítio-específica dos cassetes pLD-pelB, pLD-pelD e pLD-celD no genoma do cloroplasto e para determinar homoplasmia. A digestão do DNA total da planta com SmaT de linhagens não transformadas
21/85 e transplastômicas gerou um fragmento de 4,014 kb não transformado (UT) ou um fragmento de 6,410 kb em pelB,
6,377 kb em pelD ou 7,498 kb em celD quando hibridizado com
| a sonda | trnl - trriA | marcada com | [32P] , confirmando a | ||
| integração | sítio-específica dos | transgenes | na | região | |
| espaçadora | entre os | genes trnl e | trnA (Fig. | lc-e) | . Além |
disso, a ausência de um fragmento de 4,014 kb nas linhagens transplastômicas confirmou que a homoplasmia foi obtida (dentro dos níveis de detecção). Os fenótipos de linhagens transplastômicas pareciam normais quando comparados com plantas não transformadas e eram férteis (produziram flores, sementes, Fig. lf) .

com anticorpos despertados contra

mostraram

PelB

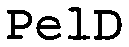
estão imunologicamente relacionados a
PelA30
Portanto, anticorpo

PelA

usado para detectar a expressão de
PelB e PelD, embora sua afinidade fosse variável em linhagens transplastômicas. Todas as linhagens transplastômicas mostraram expressão da proteína PelB ou PelD. Os níveis de expressão não se alteraram significativamente, correspondendo à sua atividade enzimática, dependendo do tempo de colheita, muito embora PelB e PelD sejam regulados pela luz (Fig. 2a,b). Isso pode ser por causa da afinidade variável entre epítopos antigênicos do anticorpo de PelB, PelD e PelA. A concentração da enzima se alterou ligeiramente com a idade da folha e diminuía em folhas mais velhas (Fig. 2a,b).
Exemplo 3: Quantificação de pectato liases (PelB, PelD), e endoglucanase (CelD) em momentos diferentes da colheita e idade da folha
A atividade da enzima variou significativamente,
22/85 dependendo dos estágios do desenvolvimento e do momento da colheita da folha. A atividade enzimática máxima foi observada em folhas maduras de PelB, PelD e CelD, com atividade reduzida em folhas mais velhas (Fig. 2c,d). As folhas maduras colhidas às 6 da tarde mostraram atividade máxima tanto em PelB quanto em PelD, enquanto CelD mostrou atividade máxima às 10 da noite (Fig. 2c,d) . Isso pode ser causado pela estabilidade aumentada da endoglucanase contra proteases em extratos de planta. A atividade de cpCelD não diminuiu significativamente em extratos brutos de plantas armazenados em temperatura ambiente, por mais de trinta dias (dados não mostrados).
A atividade enzimática de CelD foi calculada usando o reagente de DNS 31 de acordo com o protocolo de IUPAC 32. A atividade específica de cpCelD usando substrato de CMC 2% era de 493 unidades/mg de proteína solúvel total (TSP) ou 100 mg de tecido de folha, em extratos brutos preparados a partir de folhas maduras colhidas às 10 da tarde. Usando o ensaio de glicose hexoquinase, que é altamente específico para glicose, a atividade específica foi de 4,5 unidades/mg de TSP e 6,28 unidades/mg de TSP, quando avicel 5% e solução sigmacell, respectivamente, eram usados como substrato (em pH 6,0, 60°C). A enzima celulase comercial (Trichoderma reesei, EC 3.2.1.4, Sigma) gerou 4,2 unidades/mg e 3,43 unidades/mg de sólido para o mesmo substrato. As Figuras 2c e 2d mostram que aproximadamente 26 unidades, 32 unidades e 4.930 unidades de PelB, PelD e CelD foram obtidas por grama de peso fresco de folhas maduras colhidas às 6 da tarde ou 10 da tarde. Dessa forma, 2.048, 2.679 e 447.938 unidades de PelB, PelD e CelD podem
23/85 ser colhidas a partir de cada planta de tabaco (cultivar experimental, Petit Havana). Com 8.000 plantas de tabaco desenvolvidas em um acre de terra, 16, 21 e 3.584 milhões de unidades de PelB, PelD ou CelD podem ser obtidas por corte único (Tabela 1) . Com base em três cortes de tabaco em um ano, até 49, 64 e 10.751 milhões de unidades de PelB, PelD ou CelD podem ser colhidas a cada ano. O cultivar comercial gera 40 toneladas métricas biomassa de folhas frescas, em contraste com 2,2 tons no cultivar experimental Petit Havana. Portanto, espera-se que o cultivar comercial gere rendimentos 18 vezes maiores do que o cultivar experimental.
Exemplo 4: Efeito do pH e da temperatura sobre a atividade enzimática de pectato liases (PelB e PelD) e endoglucanase (CelD)
Tanto extratos de planta quanto de E. coli mostraram atividade ótima a 2,5 mg/ml de PGA (Fig. 3a). Portanto, todos os estudos de caracterização de enzima foram realizados nessa concentração de substrato. Estudos de cinética realizados pela utilização de 4 pg de TSP, com
| concentrações crescentes de PGA (0-2,5 mg), | sob condições | |||
| de ensaio padronizadas, | geraram | valores de | Km | de 0,39 e |
| 1,19 pg/ml em PelB de | cloroplasto (cp) e | E. | coli (r), | |
| respectivamente, enquanto os | valores para | PelD de | ||
| cloroplasto e E. coli | foram | de 0,50 e | 1, | 29 pg/ml, |
respectivamente. Os valores de Vmax obtidos foram de 2,75, 3,19, 2,75 e 3,14 unidades/mg para cpPelB, rPelB, cpPelD e rPelD, respectivamente (Fig. 3a).
O extrato bruto (4-5 pg de TSP) de planta ou E. coli foi usado para estudar o efeito do pH e da temperatura
24/85 sobre a atividade das enzimas. A temperatura ótima para a pectato liase de E. coli e cloroplasto derivada sob as condições de ensaio padronizadas foi de 40°C, e o pH ótimo foi de 8,0. As pectato liases derivadas de plantas mostraram um pH ótimo de 6,0 na presença de 1 mM de CaCl2. Os extratos brutos de E. coli mostraram um pH ótimo de 8,0, independentemente da presença ou ausência de CaCl2 na reação (Fig. 3b,c). O aumento da temperatura teve um efeito mínimo sobre a atividade de pectato liases derivadas de plantas, enquanto a enzima de E. coli mostrou atividade comparativamente menor em temperaturas mais elevadas (Fig.
d,e) . Essas diferenças nas propriedades da enzima de dois hospedeiros diferentes podem ser causadas por seu enovelamento. Essa possibilidade era apoiada pela observação de que foi possível detectar a enzima de E. coli com anticorpo com tag HIS, mas não a enzima do cloroplasto (dados não mostrados). É sabido que proteínas estranhas formam ligações dissulfeto em cloroplastos 33.35, mas não em E. coli, quando expressas no citoplasma. As enzimas PelB e PelD possuem um número semelhante (12 ou 14) de cisteínas que poderíam formar ligações dissulfeto 30.
A atividade de CpCelD com CMC 2% foi medida em pHs e temperaturas diferentes. A cpCelD mostrou pH ótimo entre pH 5,0 e pH 7,0 (Fig. 3f) , enquanto a enzima de E. coli teve um pH ótimo de 6,5. A temperatura ótima foi entre 50-60°C para E. coli e 50-70°C para enzima de planta (Fig. 3g) . CelD de Clostridium thermocellum é estruturalmente conhecida por ter afinidade por íons CaCl2 e também fornecia termoestabilidade 36. Embora 10 mM de CaCl2 aumentassem a atividade de CelD em CMC 2% até 2 vezes no
25/85 extrato bruto de E. coli, isso não era evidente na CelD do extrato bruto de cloroplasto durante período inicial de incubação. Isso pode ser causado pela concentração ótima de íon cálcio presente em células de plantas. No entanto, CaCl2 com 20 pg de BSA gerou uma atividade aumentada em 5 vezes ao final da incubação de 24 horas para extrato bruto de cpCelD (Fig. 3h).
Exemplo 5: CelD, PelB e PelD de E. coli vs. de cloroplasto
O extrato bruto de E. coli contendo enzima CelD mostrou diminuição da atividade enzimática quando a mistura de reação continha mais de 10 pg de TSP, em que os extratos brutos de plantas contendo CelD liberaram mais açúcar redutor com concentrações crescentes de proteína (Fig. 4a). A atividade de CelD expressa em cloroplasto foi saturada (em CMC 2%) a 150 pg de TSP (Fig. 4a, detalhe) e não houve diminuição da atividade enzimática de CelD do cloroplasto em até 500 pg de TSP, como determinado pelo ensaio do ponto final. Esses resultados mostram que extratos de plantas brutos contendo cpCelD podem ser usados diretamente para degradação de biomassa, sem qualquer necessidade de purificação, enquanto extratos de E. coli provavelmente contêm inibidores de endoglucanase. Similarmente, em concentrações maiores de proteína, rPelB e rPelD expressas por E. coli mostraram atividade de pectato liase reduzida, enquanto cpPelB ou cpPelD continuaram a aumentar a atividade até 600 pg de TSP (Fig. 4b) . Podem existir inibidores de pectato liase em extratos de E. coli, que não estão presentes em extratos brutos de plantas. Esse achado é potencialmente de alto significado prático, pois o uso de extratos brutos elimina a necessidade de purificação de
26/85 enzimas. Grandes quantidades de enzima bruta de planta podem ser utilizadas no coquetel, como mostrado abaixo, sem causar efeitos prejudiciais sobre a atividade enzimática, hidrólise ou rendimento dos produtos finais.
Exemplo 6: Coquetel de enzimas para hidrólise de papel de filtro
Antes da avaliação dos coquetéis de enzimas, a atividade de cada enzima foi testada independentemente com um substrato apropriado. Endoglucanase expressa no cloroplasto ou em E. coli (cpCelD ou rEgl) isoladamente não liberou nenhuma glicose detectável do papel de filtro, mas quando misturadas juntas, foi observada até 19% da hidrólise total (Fig. 5a, barra 1). Isso poderia ser causado por diferentes domínios de ligação de carboidrato de endoglucanases em direção ao papel de filtro. A atividade sinérgica ainda era aumentada em até 47 ou 48% quando as endoglucanases (cpCelD e rEgl) foram misturadas com swolenina (rSwol) ou beta-glicosidase (rBgll, Fig. 5a, barras 2 e 3). A adição de celobiohidrolase (rCelO) a esse coquetel duplicou a hidrólise de papel de filtro, liberando uma quantidade máxima de açúcar redutor (Fig. 5a, barra 4). Esses sinergismo observado era provavelmente causado pelo modo de ação exo da celobiohidrolase 37 pelas extremidades redutoras que eram formadas por cortes aleatórios nas cadeias de celulose por meio das endoglucanases (cpCelD e rEgl) , juntamente com a ação de expansina e betaglicosidase .
Exemplo 7: Coquetel de enzimas para hidrólise de amostra de madeira processada
O coquetel de enzimas que liberou os maiores
27/85 equivalentes de glicose com papel de filtro (exceto rEgl) foi testado em substrato de madeira processada. Após hidrólise por 24 horas, 31% da hidrólise total foram observadas com esse coquetel (Fig. 5b, barra 1). Um coquetel de enzimas de endoxilanase e acetil xilana esterase mostrou 41% de hidrólise total (Fig. 5b, barra 2). Quando esses dois coquetéis foram combinados juntos, a hidrólise aumentou até 88% (Fig. 5b, barra 3) . Quando o substrato de madeira processada primeiro foi tratado com pectato liases, seguido pela adição do coquetel de enzimas na barra 3, a hidrólise global foi aumentada ainda mais, com liberação de até 275 pg de glicose após incubação por 36 horas (Fig. 5b, barra 4). A adição de extratos de enzima de cutinase e lipase (ambos com atividade de lipase) não teve um efeito significativo sobre a liberação de açúcares fermentáveis (dados não mostrados). 0 coquetel de enzimas Novozyme 188 não gerou quaisquer equivalentes de glicose detectáveis a partir da madeira processada, enquanto Celluclast 1.5L gerou 10% mais do que o coquetel de extrato bruto, com unidades equivalentes de enzima com base na hidrólise de CMC.
De acordo com uma modalidade, a invenção pertence a um método para a digestão de uma amostra de biomassa à base de madeira que compreende a obtenção de um material de planta que compreende endoxilanase ou acetil xilana esterase, ou uma combinação destas, que foi expressa em uma planta da qual todo ou uma porção do referido material de planta é derivada; e mistura do referido material de planta com a referida amostra de biomassa à base de madeira. O método dessa modalidade pode ainda incluir a mistura com a amostra
28/85 de biomassa à base de madeira, antes ou simultânea à mistura com o material de planta de endoxilanase e/ou acetil xilana esterase, um material de planta que compreende uma pectato liase que foi expresso em uma planta da qual todo ou uma porção do referido material de planta é derivada. O material de planta pode compreender rubisco.
Outra modalidade pertence a um coquetel de enzimas de degradação de plantas útil na digestão de uma amostra de biomassa à base de madeira que compreende celulase, beta glicosidase, xilanase, alfa-amilase, amiloglicosidase, pectina liase, swolenina ou pectato liase, ou uma combinação destas, expressas em uma planta, opcionalmente com uma quantidade de rubisco.
Exemplo 8: Coquetel de enzimas para hidrólise de resíduos de cítricos coquetel de enzimas de endoglucanase (cpCelD), exoglucanase, swolenina e beta-glicosidase liberou até 24% de hidrólise total com casca de cítricos (Fig. 5c, barra 1) . Quando a casca de cítricos foi tratada com pectato liases (cpPelB, cpPelD e rPelA), a hidrólise foi duplicada (Fig. 5c, barra 2) . Pectato liases contribuirão para até 47% de hidrólise total nesse coquetel, por causa do alto teor de pectina (23%) na casca de cítricos 41. A adição de endoxilanase, acetil xilana esterase, cutinase e lipase a ambos esses coquetéis liberou até 360 pg/ml de equivalentes de glicose de 100 mg de casca de cítricos moída após um período de incubação de 24 horas (Fig. 5c, barra 3) . Enzimas como cutinase e lipase podem ter hidrolisado corpos oleosos presentes na casca de cítricos, fornecendo maior acesso às endoglucanase, endoxilanase e pectato liases para
29/85 uma hidrólise eficiente da casca de cítricos. O coquetel de enzimas Novozyme 188 gerou 11% mais equivalentes de glicose com casca de cítricos, enquanto Celluclast 1.5L gerou 137% mais do que o coquetel de extrato bruto com unidades de enzima equivalentes com base na hidrólise de CMC.
De acordo com uma modalidade, a invenção pertence a um método para a digestão de uma amostra de biomassa de cítricos que compreende a obtenção de um material de planta que compreende celulase, beta-glicosidase, xilanase, alfaamilase, amiloglicosidase, pectina liase ou pectato liase, ou uma combinação destas, que foi expressa em uma planta da qual todo ou uma porção do referido material de planta é derivada; e mistura do referido material de planta com a referida amostra de biomassa de cítricos.
Outra modalidade pertence a um coquetel de enzimas de degradação de plantas útil na digestão de uma amostra de biomassa de cítricos que compreende celulase, betaglicosidase, xilanase, alfa-amilase, amiloglicosidase, pectina liase, swolenina ou pectato liase, ou uma combinação destas, expressas em uma planta, opcionalmente com uma quantidade de rubisco.
Métodos relacionados aos Exemplos 1-8
Isolamento de genes e construção de vetores de transformação de plastídio
DNA genômico de Clostridium thermocellum e Trichoderma
| reesei foi | obtido | de | ATCC | e usado | como modelo | para a | |
| amplificação | de | diferentes genes | • | Foram designados | |||
| iniciadores | gene-específicos | usando | um | iniciador | direto | ||
| (forward) contendo | um | sítio | NdeT e | um | iniciador | reverso | |
| contendo um | sítio | Xbal | para | clonagem | no | vetor pLD | para os |
30/85 genes celO, celO e lipY. A região madura de genes de celulose celD (X04584) e celO (AJ275975) foi amplificada a partir de DNA genômico de Clostridium thermocellum. LipY (NC_000962) foi amplificado a partir do DNA genômico de Mycobacterium tuberculosis. Foram designados iniciadores superpostos para a amplificação de vários éxons de egll (M15665) , egl (AB003694) , swol (AJ245918) , axel (Z69256) , xyn2 (X69574) e bgll (U09580) a partir do DNA genômico de Trichoderma reesei usando um novo método. O cDNA de comprimento total desses genes foi amplificado a partir de éxons diferentes por um novo método baseado em PCR usando o iniciador direto do primeiro éxon e reverso do último éxon contendo um sítio Ndel e sítio XbaT, respectivamente. Os genes de pectato liase peíA, pelB e pelO de Fusarium solani com sítios de restrição similares foram amplificados usando iniciadores gene-específicos de pHILD2A, pHILD2B 30 e pHILD2D 45, respectivamente. Uma estratégia similar foi usada para amplificar o gene de cutinase 4S a partir do clone recombinante de Fusarium solani. Todos os produtos de comprimento total amplificados foram ligados ao vetor pCR Blunt II Topo (Invitrogen) e foram submetidos ao sequenciamento de DNA (Genewiz). Cada gene clonado no vetor Topo foi digerido com NdeT/XbaT e inserido no vetor pLD 17,47 para fazer um vetor de expressão de tabaco em cloroplasto.
Regeneração de plantas transplastômicas e avaliação da integração do transgene por PCR e Southern-blot
Nicotiana tabacum var. Petite Havana foi desenvolvida assepticamente em meio de ágar de Murashige e Skoog (MS) sem hormônios contendo 30 g/l de sacarose. Folhas jovens
31/85 estéreis de plantas nos estágios de 4-6 folhas foram bombardeadas usando partículas de ouro revestidas com vetor pLD-PelB, pLD-PelD e pLD-CelD, e as plantas transplastômicas foram regeneradas como descrito previamente 28,29 . o DNA genômico da planta foi isolado usando o mini kit de planta Qiagen DNeasy a partir de folhas. A análise por PCR foi realizada para confirmar a integração do transgene nas regiões de repetição invertidas do genoma do cloroplasto usando dois conjuntos de iniciadores 3P/3M e 5P/2M, respectivamente 17. A reação de PCR foi realizada como descrito previamente 17,29. As folhas dos brotos PCR-positivos foram novamente cortadas em pequenos pedaços e transferidas em meio RMOP (meio de regeneração de plantas) contendo 500 mg/1 de espectinomicina para outra rodada de seleção, e subsequentemente movidas para meio MSO (sais MS sem vitaminas e hormônios de crescimento) contendo 500 mg/1 de espectinomicina para outra rodada de seleção para gerar linhagens homoplásmicas. Análise Southern-blot foi realizada para confirmar a homoplasmia de acordo com o protocolo do lab 48. Resumidamente, o DNA genômico total de planta (1-2 pg) isolado de folhas foi digerido com SmaT e hibridizado com sonda da sequência flanqueadora de cloroplasto marcada com 32P a[dCTP] (0,81 kb) contendo os genes trnl-trnA. A hibridização foi realizada pela utilização da solução e do protocolo de hibridização Stratagene QUICK-HYB.
Análise imunoblot
Aproximadamente 100 mg de folhas foram moídos em nitrogênio líquido e usados para análise imunoblot, como
32/85 descrito previamente 48. A concentração de proteína foi determinada pelo kit de reagente de ensaio de proteína de Bradford (Bio-Rad). Quantidades iguais de proteína solúvel total foram separadas por SDS-PAGE e transferidas para uma membrana de nitrocelulose. A expressão de proteína transgênica foi detectada usando soro policlonal despertado contra PelA em coelhos.
Preparação enzimática de E. coli (bruta)
E. coli cepa (XL-10 gold) que abriga a expressão em vetores de cloroplasto que expressam rCelD, rEgl (EC 3.2.1.4), rCelO (EC 3.2.1.91), rXyn2 (EC 3.2.1.8), rAxel (EC 3.1.1.72), rBgll (EC 3.2.1.21), rCutinase (EC 3.1.1.74), rLipY (lipase, EC 3.1.1.3), rPelA, rPelB, rPelD (EC 4.2.2.2) ou rSwol foi desenvolvida de um dia para o outro a 37°C. As células foram coletadas a 4°C e sonifiçadas quatro vezes com pulsos de 30 s no tampão adequado (50 mM de tampão de acetato de sódio com pH 5,5 para CelD, Egl, CelO, Swol, Xyn2, Axel, Bgll, 100 mM de Tris-Cl com pH 7,0 para cutinase, lipase, PelA, PelB e PelD) contendo coquetel inibidor de protease (Roche) e azida de sódio (0,02%). O sobrenadante foi coletado após centrifugação a 16.000 x g por 10 minutos e a concentração de proteína foi determinada.
Preparação enzimática a partir de material de folha transplastômica de tabaco
Folhas verdes frescas foram coletadas e moídas em nitrogênio líquido. A proteína solúvel total foi extraída em 50 mM de tampão de acetato de sódio, pH 5,5 para cpCelD, cpXyn2, ou 100 mM Tris-Cl tampão, pH 7,0 para PelD e PelB. Todos os tampões continham coquetel inibidor de protease
33/85 (Roche) e azida de sódio (0,02%). A proteína solúvel total foi filtrada usando um filtro de seringa de 0,22 pm. A concentração de proteína (mg/ml) em TSP foi determinada usando o método de Bradford.
Ensaios enzimáticos para pectato liase B e pectato liase D
Pectato liases B e D foram avaliadas espectrofotometricamente por medida do aumento em A235 30,49,50 As cinéticas das pectato liases B e D foram estudadas para otimizar a concentração de substrato (0-2,5 mg) sob concentrações idênticas de proteína e cofator. As misturas de reação continham 1 ml de 50 mM de tampão de Tris-HCl (pH 8,0) com 1 mM de CaCl2 (recém-preparado) , 1 ml de 0,0-2,5 mg/ml de poligalacturonato de sódio (Sigma) e 0,5 ml de solução de enzima adequadamente diluída. As medidas foram realizadas a 40°C. Uma unidade de enzima foi definida como a quantidade de enzima que forma 1 pmol de produto por min com um coeficiente de extinção molar de 4.600 pmol'1 cm'1. Os estudos da cinética foram realizados em 50 mM de tampão de Tris-HCl, pH 8,0 a 40°C. Os parâmetros cinéticos (Km e Vmax) foram calculados usando regressão não linear com o uso do software Graphpad Prism 5.0. As inclinações iniciais de cada concentração de substrato foram calculadas, em que a velocidade (unidades/mg/min) foi definida através da liberação de ácido galacturônico não saturado. A otimização da temperatura para atividade de pectato liase B e D foi realizada em 50 mM de tampão de Tris-HCl, pH 8,0, em diferentes temperaturas que variam de 30°C a 70°C. Em cada caso, o substrato foi pré-incubado na temperatura desejada
34/85 por min. A fim de estudar a estabilidade térmica da enzima, amostras tamponadas de enzima foram incubadas por um período de tempo fixo em diferentes temperaturas.
O pH ótimo da pectato liase B e D foi medido a 40°C usando diferentes tampões com pH variando de 6 a 10, com a mesma potência iônica. A estabilidade do extrato bruto da enzima foi otimizada por incubação da enzima nos diferentes pHs. A influência do cofator CaCl2 sobre a atividade da pectato liase foi estudada por realização das reações em sua presença e ausência em diferentes pHs e temperaturas.
Ensaio enzimático para CelD e coquetel comercial (Celluclast 1.5L e Novozyme 188)
A atividade enzimática de celulase de cpCelD foi determinada por incubação do extrato bruto em carboxilmetilcelulose 2%, avicel e sigmacell (Sigma) como substrato de acordo com as recomendações IUPAC 32 em 50 mM de tampão de acetato de sódio pH 6,0, e incubada a 60°C por 3 0 minutos para CMC e 2 horas para avicel e sigmacell. As unidades de enzima de coquetéis comerciais Celluclast 1.5L e Novozyme 188 foram determinadas usando CMC 2%, sob condições de ensaio idênticas. A quantidade de açúcar redutor foi determinada usando ácido 3,5-dinitrossalicílico 31. D-glicose e ácido D-galacturônico foram usados como padrão para medir a liberação de equivalentes de glicose e moléculas de ácido galacturônico não saturado. CMC (2%) foi usado na determinação do perfil de atividade de pH e temperatura de cpCelD. Uma unidade de enzima foi definida como a quantidade de enzima que liberava 1 μτηοΐ de equivalente de glicose por minuto/ml. O cálculo de unidade de celulase para avicel e sigmacell foi baseado no método
35/85 de glicose hexoquinase de acordo com o protocolo do fabricante (Sigma).
Hidrólise enzimática de papel de filtro, madeira processada e casca de cítricos
Ensaios enzimáticos foram realizados com um componente enzimático ou como coquetel em papel de filtro, madeira processada e casca de laranja e o açúcar redutor liberado foi determinado usando o método de DNS. Casca de laranja preparada a partir da fruta laranja Valência (Citrus sinensis cv Valência) foi seca ao ar de um dia para o outro e moída em nitrogênio líquido. Casca de laranja Valência moída e biomassa de madeira pré-tratada foram lavadas várias vezes em água destilada até que nenhum açúcar redutor fosse detectado por reagente de DNS, bem como pelo método de glicose hexoquinase.
Para digestão enzimática, foram usados 50-200 mg de amostra de madeira processada ou casca de laranja moída. Extratos brutos contendo enzimas de E. coli e de plantas foram usados no coquetel para hidrólise. O açúcar redutor do produto final foi determinado usando o reagente de DNS 31 e D-glicose como padrão. Ampicilina e canamicina a 100 pg/ml foram adicionadas para evitar qualquer crescimento microbiano durante as longas durações da hidrólise enzimática. Coquetéis de enzimas comerciais Celluclast 1.5L e Novozyme 188 foram testados quanto à hidrólise de casca de cítricos e madeira processada nas mesmas condições de ensaio usadas para os coquetéis de enzimas de extratos brutos. Unidades de enzima de Celluclast 1.5L e Novozyme 188 usadas para os ensaios de hidrólise eram equivalentes às unidades de enzima cpCelD (com base na hidrólise de CMC)
36/85 presentes em coquetéis de extratos brutos. Em todos os experimentos, os ensaios de controle continham substrato sem enzima ou enzima sem substrato. Todos os experimentos e ensaios foram realizados em triplicata.
Os inventores usaram sequências codificadoras de genomas bacterianos ou fúngicos para criar vetores de cloroplasto. Um novo método baseado em PCR foi usado para clonar ORFs sem íntrons de DNA genômico fúngico. O sistema de expressão de E. coli foi usado para avaliar a funcionalidade de cada enzima independentemente ou sua eficácia em coquetéis de enzimas antes de criar linhagens transgênicas; enzimas de origem fúngica eram ativas sem qualquer necessidade de modificações pós-tradução (ligações dissulfeto ou glicosilação). Os fenótipos de linhagens transplastômicas homoplásmicas eram normais e produziram flores e sementes. Com base em três cortes de tabaco em um ano 49'64, 10.751 milhões de unidades de atividade de pectato liase e endoglucanase podem ser obtidas a cada ano em um cultivar experimental. Esse rendimento poderia ser aumentado 18 vezes quando essas enzimas são produzidas em cultivares comerciais. Com base no Economic Research Service do USDA, o custo de produção de tabaco Burley em 2 004 foi de U$ 3.981 por acre. Como a maioria das enzimas para a hidrólise de biomassa de planta é ativa em temperaturas mais elevadas, é factível colher folhas e secá-las ao sol, como relatado previamente para xilanase derivada de cloroplasto 25. Com base na atividade enzimática observada em extratos brutos de plantas nesse estudo, não há necessidade de purificação. Portanto, excluindo o custo de processamento, as enzimas poderíam ser
37/85 produzidas por apenas U$ 0,008 para PelB, U$ 0,006 para PelD por unidade de enzima (como definido na fonte comercial Megazyme). Isso é 925-1.233 vezes mais barato para pectato liase B e D, quando comparado com os custos comerciais atuais (Megazyme produzida por C. japonicus). Embora essa comparação de custos ou rendimento possa não ser a mesma para todas as enzimas derivadas de cloroplasto, esse conceito fornece uma nova plataforma promissora para coquetéis de enzimas baratos para a produção de açúcares fermentáveis a partir de biomassa lignocelulósica.
Que seja do nosso conhecimento, esse é o primeiro estudo que utiliza coquetéis de enzimas expressas em plantas para hidrólise de biomassa lignocelulósica para a produção de açúcares fermentáveis e comparação direta das propriedades da enzima produzidas por meio de fermentação ou em plantas, usando genes e sequências reguladoras idênticas. A maioria dos estudos sobre hidrólise enzimática em substratos naturais como, por exemplo, madeira prétratada, forragem de milho ou palha de trigo, utilizou enzimas disponíveis comercialmente 3,42 ou enzimas recombinantes purificadas reforçadas com enzimas comerciais purificadas 40,43 . a comparação precisa de coquetéis de enzimas de extratos brutos com coquetéis comerciais não é possível, já que suas composições de enzimas não são conhecidas. Portanto, unidades de enzima equivalentes com base na hidrólise de CMC foram usadas como uma base para comparação geral. ACCELLERASE TM 1000 (Genencor) não estava disponível para esse estudo, em função de acordos institucionais necessários. O coquetel de enzimas purificadas Novozyme 188 não gerou equivalentes de glicose
38/85 detectáveis a partir de madeira processada, e 11% mais equivalentes de glicose com casca de cítricos, enquanto Celluclast 1.5L gerou 10% e 137% mais com ambos os substratos de biomassa do que o coquetel de extrato bruto, com unidades de enzima equivalentes com base na hidrólise de CMC. Não é surpreendente que os coquetéis de extrato bruto tenham tido um desempenho igual ou melhor do que os coquetéis de enzimas purificadas, pois esses últimos são produzidos por fermentação submersa de cepas fúngicas selecionadas que secretam várias enzimas, simultaneamente. De acordo com Novozymes, é necessário um design cuidadoso de uma combinação de enzimas de componente único para utilização racional desses coquetéis de enzimas 44.
Exemplo 9: Expressão de enzimas de degradação de plantas
Os ensinamentos apresentados nos Exemplos 1-8 podem ser adaptados para a preparação de cassetes de expressão do gene heterólogo, construção de vetores de transformação; transformação de cloroplastos e expressão em cloroplasto de qualquer uma em uma numerosa lista de enzimas que os inventores identificaram que serão úteis na degradação de biomassa de fontes de plantas. Além disso, os Requerentes referem-se às Publicações de Patente U.S. 20070124830 e 20060117412 para técnicas de transformação de cloroplasto e expressão de proteínas.
Uma lista não limitante de enzimas exemplares inclui as seguintes na Tabela I:
Tabela I
GOI (Genes de interesse)
39/85
1. Endoglucanases
a) celD (Clostridium thermocellum)
b) egl (Trichoderma reesei)
c) egll (Trichoderma reesei)
2. Exoglucanase
a) celO (Clostridium thermocellum)
3. Lipase
a) lipY (Mycobacterium tuberculosis)
4. Pectato liases
a) pelA (Fusarium solani)
b) pelB (Fusarium solani)
c) pelO (Fusarium solani)
5. Cutinase
a) cut (Fusarium solani)
6. Swolenina similar ãs expansinas
a) swol (Trichoderma reesei)
7. Xilanase
a) xyn2 (Trichoderma reesei)
8. Acetil xilana esterase
a) axel (Trichoderma reesei)
9. Beta-glicosidase
a) bgll (Trichoderma reesei)
10. Mananase
a) manl (Trichoderma reesei)
11. Arablnofuranosidase
a) abfl (Trichoderma reesei)
12. Lignina peroxidase
a) lipJ (Mycobacterium tuberculosis)
Além da lista acima, as tabelas anexadas II-VII
40/85 apresentam uma lista de diferentes enzimas que podem ser usadas em conjunto com modalidades da invenção. Os Nos EC são designações reconhecidas (http://www.chem.qmul.ac.uk/iubmb/enzyme/ e NC-IUBMB) que definem cada uma das enzimas com referências cruzadas para sequências de polipeptídeos relevantes e sequências de polinucleotídeos codificadoras. Os Nos de acesso pertencem às identificações de sequências no Genbank (uma letra seguida por cinco dígitos, por exemplo, M12345) ou o formato RefSeq (duas letras seguidas por uma sub-barra e seis dígitos, por exemplo, NT_123456) . Cada uma das sequências e Nos de acesso relacionados estão armazenados na divisão Corenucleotide do sistema de base de dados
GenBank. Um N° de acesso listado nas Tabelas II-VII para um gene específico pode ser facilmente encontrado por inserção do número de acesso no campo de pesquisa do sistema Entrez encontrado em (http://www.ncbi.nlm.nih.gov/sites/gquery).
Em uma modalidade específica, as sequências dos Nos de acesso listadas especificamente nas tabelas II-VI incluem aquelas em seu estado original ou como revisadas/atualizadas no sistema Genbank em 28 de fevereiro de 2008.
Em outras modalidades, é contemplado que as sequências podem ser revisadas/atualizadas depois de 28 de fevereiro de 2008, mas de outro modo reconhecidas pela técnica como a sequência mais precisa do N° de acesso comparada com a sequência armazenada antes de 28 de fevereiro de 2008. Nessas outras modalidades, sequências revisadas, mas reconhecidas como a sequência verdadeira e que possui uma identidade de sequência de pelo menos 95% para a sequência armazenada na base de dados antes de 28 de
41/85 fevereiro de 2008, devem ser consideradas como a sequência para o N° de acesso relevante.
Os requerentes também incorporam por referência o arquivo de texto ASCII intitulado 10669-034segid depositado com o presente pedido. Esse arquivo de texto contém informação de sequência do Nos de acesso listados nas Tabelas II-VII.
Além disso, nucleotídeos e peptídeos que possuem identidade substancial para as sequências de nucleotídeos e aminoácidos com relação às enzimas de degradação de plantas (por exemplo, aquelas fornecidas nas tabelas II-VII) usadas em conjunto com a presente invenção também podem ser empregados em modalidades preferidas. Aqui, identidade substancial significa que duas sequências, quando otimamente alinhadas como, por exemplo, pelos programas GAP ou BESTFIT (peptídeos) usando ponderações de (gap) padronizadas, ou como medido pelos algoritmos computacionais BLASTX ou BLASTP, compartilham pelo menos 50%, preferivelmente 75% e, principalmente, 95% de identidade de sequência. De preferência, as posições de resíduo que não são idênticas diferem por substituições de aminoácidos conservadoras. Por exemplo, é provável que a substituição de aminoácidos que possuem propriedades químicas similares como, por exemplo, carga ou polaridade, não afete as propriedades de uma proteína. Exemplos não limitantes incluem glutamina para asparagina ou ácido glutâmico para ácido aspártico.
O termo variante, como aqui usado, refere-se às sequências de nucleotídeos e polipeptídeos em que a sequência de nucleotídeos ou aminoácidos exibe identidade
42/85 substancial com a sequência de nucleotídeos ou aminoácidos do Anexo B, preferivelmente 75% de identidade de sequência e, principalmente, 90-95% de identidade de sequência para as sequências da presente invenção: desde que a referida variante possua uma atividade biológica como aqui definida. A variante pode surgir por modificação da sequência de nucleotídeos ou aminoácidos nativa por modificações como, por exemplo, inserção, substituição ou eliminação de um ou mais nucleotídeos ou aminoácidos, ou ela pode ser uma variante de ocorrência natural. O termo variante também inclui sequências homólogas que hibridizam para as sequências da invenção sob condições de hibridização padronizadas ou, preferivelmente, rigorosas, familiares àqueles habilitados na técnica. Exemplos do procedimento de hibridização in situ tipicamente usado são descritos em Tisdall e cols., 1999; Juengel e cols., 2000. Quando for desejada uma variante desse tipo, a sequência de nucleotídeos do DNA nativo será alterada adequadamente. Essa alteração pode ser feita por meio da síntese eletiva do DNA ou por modificação do DNA nativo, por exemplo, por mutagênese sítio-específica ou por cassete. De preferência, quando porções de cDNA ou
DNA genômico exigirem modificações da sequência, será empregada a mutagênese sítio-específica dirigida por iniciador, usando metodologias padronizadas na técnica.
Em modalidades específicas, uma variante de um polipeptídeo é aquela que possui pelo menos cerca de 80% de identidade de sequência de aminoácidos com a sequência de aminoácidos da sequência de comprimento total de uma sequência nativa das enzimas de degradação de plantas
43/85 fornecidas no arquivo ASCII anexado 10669-034SEDID. Esses polipeptídeos variantes incluem, por exemplo, polipeptídeos nos quais um ou mais resíduos de aminoácidos são adicionados, ou eliminados, no terminal N e/ou C, bem como dentro de um ou mais domínios internos, da sequência de aminoácidos de comprimento total. Fragmentos dos peptídeos também são contemplados. Normalmente, um polipeptídeo variante terá pelo menos cerca de 80% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 81% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 82% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 83% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 84% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 85% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 86% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 87% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 88% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 89% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 90% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 91% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 92% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 93% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 94%
44/85 de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 95% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 96% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 97% de identidade de sequência de aminoácidos, mais preferivelmente pelo menos cerca de 98% de identidade de sequência de aminoácidos e ainda mais preferivelmente pelo menos cerca de 99% de identidade de sequência de aminoácidos com um polipeptideo codificado por uma molécula de ácido nucléico mostrada no Anexo B ou um fragmento especificado desta. Normalmente, polipeptídeos variantes possuem pelo menos cerca de 10 aminoácidos de comprimento, frequentemente pelo menos cerca de 20 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 30 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 40 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 50 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 60 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 70 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 80 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 90 aminoácidos de comprimento, mais frequentemente pelo menos cerca de 100 aminoácidos de comprimento, ou mais.
O rigor de reações de hibridização é facilmente determinável por aqueles habilitados na técnica, e geralmente é um cálculo empírico dependente do comprimento da sonda, da temperatura de lavagem e da concentração de sal. Em geral, sondas mais longas exigem temperaturas
45/85 maiores para anelamento adequado, enquanto sondas mais curtas precisam de temperaturas menores. A hibridização geralmente depende da habilidade do DNA desnaturado para reanelar quando fitas complementares estão presentes em um ambiente abaixo de sua temperatura de fusão. Quanto maior o grau de identidade desejado entre a sonda e a sequência hibridizável, maior a temperatura relativa que pode ser usada. Como resultado, por conseguinte, temperaturas relativas maiores tenderíam a tornar as condições de reação mais rigorosas, enquanto temperaturas menores tendería, a tornar menos rigorosas. Para detalhes e explicações adicionais sobre o rigor das reações de hibridização, veja Ausubel e cols., Current Protocols in Molecular Biology, Wiley Interscience Publishers, (1995) .
Condições rigorosas ou condições de alto rigor, como aqui definidas, são identificadas como aquelas que: (1) empregam baixa potência iônica e alta temperatura para lavagem, 0,015 M de cloreto de sódio/0,0015 M de citrato de sódio/dodecil sulfato de sódio 0,1% a 50°C; (2) empregam durante a hibridização um agente desnaturante, formamida 50% (v/v) com albumina sérica bovina 0,1%/ Ficoll 0,1%/polivinilpirrolidona 0,l%/50 mM de tampão de fosfato de sódio em pH 6,5 com 750 mM de cloreto de sódio, 75 mM de citrato de sódio a 42°C; ou (3) empregam formamida 50%, 5X SSC (0,75 M de NaCl, 0,075 M de citrato de sódio), 50 mM de fosfato de sódio (pH 6,8), pirofosfato de sódio 0,1%, solução de Denhardt 5 vezes, DNA de esperma de salmão sonificado (50 pg/ml), SDS 0,1% e sulfato de dextrana 10% a 42°C, com lavagens a 42°C em 0,2X SSC (cloreto de sódio/citrato de sódio) e formamida 50% a 55°C, seguidas
46/85 por uma lavagem de alto rigor que consiste em 0. IX SSC contendo EDTA a 55°C.
Condições de rigor moderado são identificadas como descrito por Sambrook e cols., Molecular Cloning: A Laboratory Manual, Nova York: Cold Spring Harbor Press, 1989, e incluem o uso de solução de lavagem e condições de hibridização (por exemplo, temperatura, potência iônica e % de SDS) menos rigorosas do que aquelas descritas acima. Um exemplo de condições moderadamente rigorosas é incubação de um dia para o outro a 37°C em uma solução que compreende: formamida 20%, 5X SSC (150 mM de NaCl, 15 mM citrato trissódico), 50 mM de fosfato de sódio (pH 7,6), 5x solução de Denhardt, sulfato de dextrana 10% e 20 mg/ml de DNA de esperma de salmão desnaturado cisalhado, seguido por lavagem dos filtros em IX SSC em torno de 37-50°C. Aqueles habilitados na técnica reconhecerão como ajustar a temperatura, potência iônica etc. como necessário para acomodar fatores como, por exemplo, o comprimento da sonda, e semelhantes.
Tipicamente, para condições de hibridização rigorosas, deve ser escolhida uma combinação de temperatura e concentração de sal que seja aproximadamente 12-20°C abaixo
| da Tm calculada do híbrido sob estudo. A Tm de um híbrido | |||
| entre um polinucleotídeo | que | possui uma | sequência de |
| nucleotídeos mostrada no | ID. | DE SEQ. N | ° : 1, ou o |
complemento desta, e um sequência de polinucleotídeos que é pelo menos cerca de 50, preferivelmente cerca de 75, 90, 96 ou 98% idêntica a uma daquelas sequências de nucleotídeos, que pode ser calculada, por exemplo, com o uso da equação de Bolton e McCarthy, Proc. Natl. Acad. Sei. U.S. A. 48,
47/85
1.390 (1962) :
Tm = 81,5°C - 16,6 (logio [Na+] ) + 0,41 (% de G+C)-0,63 (% de formamida)-600/1) em que 1 = o comprimento do híbrido em pares de bases.
Em uma modalidade específica, condições de lavagem rigorosas incluem, por exemplo, 4 X SSC a 65°C, ou formamida 50%, 4 X SSC a 42°C ou 0,5 X SSC, SDS 0,1% a
65°C. Condições de lavagem altamente rigorosas incluem, por exemplo, 0,2 X SSC a 65°C.
Exemplo 10: Otimização de coquetéis de enzimas recombinantes expressas
Tendo sido demonstrado por vários exemplos que enzimas de degradação de plantas podem ser expressas em plantas e bactérias, podem ser produzidos coquetéis de enzimas que são especialmente adaptados para a degradação de uma classe visada de biomassa. Os inventores descobriram que certas combinações de enzimas selecionadas são capazes de hidrolisar materiais de biomassa de forma sinérgica. Por exemplo, foi descoberto que duas ou mais enzimas de uma classe em particular funcionam sinergicamente para degradar material-alvo na biomassa para aumentar o rendimento obtido de açúcares fermentáveis. Com base na composição conhecida de uma amostra de biomassa-alvo, mais de uma enzima em uma classe em particular são incluídas no coquetel de degradação de plantas. Além disso, a quantidade de enzima de uma classe de enzima especifica que sabidamente degrada um composto específico em uma amostra de biomassa está aumentada em relação à outra enzima no coquetel em função da proporção do composto específico/massa da amostra de biomassa. Informações gerais em relação às classes
48/85 exemplares de enzimas são discutidas abaixo no relacionamento como o tipo de substratos sobre os quais atuam. Equipados com os ensinamentos e técnicas aqui discutidos, aqueles habilitados na técnica são capazes de determinar coquetéis adequados para certa biomassa, e métodos pelos quais a sinergia das enzimas nos coquetéis pode ser determinada.
Ensaios enzimáticos
A maioria dos ensaios enzimáticos foi determinada espectrofotometricamente por medida do aumento em A235 30,47,48 . As cinéticas enzimáticas foram estudadas para otimizar a concentração de substrato (0-2,5 mg) sob concentrações idênticas de proteína e cofator. As misturas de reação continham tampões, substratos e enzimas-padrão apropriados, quando comercialmente disponíveis. As medidas foram feitas em diferentes temperaturas e pHs. Uma unidade de enzima é definida como a quantidade de enzima que forma 1 pmol de produto por min com coeficiente de extinção molar apropriado. Os parâmetros cinéticos (Km e Vmax) são calculados usando regressão não linear com utilização do software Graphpad Prism 5.0. As inclinações iniciais de cada concentração de substrato são calculadas, em que a velocidade (unidades/mg/min) é definida através da liberação do produto apropriado. A otimização da temperatura é determinada em tampões adequados com cofatores necessários, substratos em pH ótimo. A fim de estudar a estabilidade térmica de cada enzima, as amostras tamponadas de enzima são incubadas por períodos de tempo fixos em diferentes temperaturas. Similarmente, o pH ótimo de cada enzima é medido em temperaturas ótimas usando
49/85 diferente tampões com pH que varia de 6 a 10, com a mesma potência iônica. A estabilidade do extrato bruto da enzima é otimizada por incubação da enzima nos diferentes pHs. A influência de vários cofatores para a atividade enzimática ótima é estudada realizando-se as reações na presença ou ausência de cada cofator, em diferentes pHs e temperaturas.
Endoglucanase, celobiohidrolase e beta-glicosidase:
A celulose é a fonte biológica renovável mais abundante produzida na biosfera através de processo fotossintético (aproximadamente 100 bilhões de toneladas secas/ano) 49-51. A biodegradação da celulose por celulases e celulossomas, produzidas por vários microorganismos, representa um fluxo de carbono importante de depósitos fixos de carbono para o C02 atmosférico, e estudos demonstraram que o uso de produtos de origem biológica e bioenergia podem obter zero de emissão líquida de dióxido de carbono 52'53 . a celulose é um polímero de condensação linear que consiste em D-anidroglicopiranose unidos juntos por ligações 3-1,4-glicosídicas com um grau de polimerização (DP) de 100 a 20.000. Aproximadamente 30 moléculas individuais de celulose são montadas em unidades maiores conhecidas como fibrilas elementares (protofibrilas), que são compactadas em unidades maiores denominadas microfibrilas, e essas, por sua vez, são montadas em fibras de celulose grandes 54,55 . a degradação da biomassa envolve a liberação de polissacarídeos de cadeia longa, especificamente celulose e hemicelulose, e a subsequente hidrólise desses polissacarídeos em seus açúcares componentes com cadeia de 5 e 6 carbonos 15. Um dos desafios tecnológicos mais importantes e difíceis é
50/85 superar a resistência de materiais lignocelulósicos naturais, que devem ser enzimaticamente hidrolisados para a produção de açúcares fermentáveis 2-7-8-56'52.
O mecanismo de degradação de celulose envolve três classes de enzimas de celulase. Essas incluem endoglucanases ou 1,4-p-D-glucan-4-glicanohidrolases (EC 3.2.1.4), exoglucanase ou 1,4-3-D-glicano celobiohidrolases (E.C. 3.2.1.91), e β-glicosidase ou β-glicosídeo glicohidrolases (E.C. 3.2.1.21) 55,58,59. as ações combinadas de endoglucanases e exoglucanases modificam a natureza cristalina da superfície da celulose ao longo do tempo, resultando em mudanças rápidas nas taxas de hidrólise 60. O inventor percebeu que a ação simultânea dessa classe de enzima no substrato de celulose degrada completamente as ligações 3-1,4-glicosídicas intramoleculares de cadeias de celulose. Isso resulta na liberação de grandes quantidades de moléculas fermentáveis de glicose.
Endoglucanases (por exemplo, CelD, Egl) : Endoglucanases cortam de forma aleatória em sítios internos amorfos na cadeia polissacarídica de celulose, gerando oligossacarídeos de vários comprimentos e, consequentemente, expõem novas extremidades da cadeia. Exoglucanases (por exemplo, CelO, Cbh2): Exoglucanases ou celobiohidrolases atuam no processamento das extremidades redutoras ou não redutoras das cadeias polissacarídicas da celulose, liberando glicose (glicanohidrolases) ou celobiose (celobiohidrolase) como produtos principais. Celobiohidrolases também podem atuar sobre a estrutura de celulose amorfa e microcristalina que possui extremidades expostas da cadeia de celulose. β-Glicosidases (por
51/85 exemplo, BglA, Bgll): hidrolisam celobiose solúvel, além de moléculas de celodextrinas mais longas em glicose.
CelD,____Egll,____EG1____(endoglucanases)____e____CelO (celobiohidrolase): Substrato: Carboxilmetilcelulose (2%) beta D-glicano (10 mg/ml), celulose microcristalina, Avicel, celulose Sigma (todas 50 mg/ml). São feitas pelo menos duas diluições para cada amostra de enzima investigada em 50 mM de tampão de acetato de sódio contendo 10 mM de CaCl2 e 20 pg de BSA. No ensaio, uma diluição deve liberar ligeiramente mais e uma ligeiramente menos do que 0,5 mg (quantidade absoluta) de glicose. A amostra é incubada em temperatura apropriada por 30 minutos após adição de 0,5 ml de solução de substrato. Após incubação, 0,5 ml de DNS é adicionado a 0,5 ml da mistura de reação, seguido por fervura por exatamente 5 minutos em um banhomaria em ebulição juntamente com vazios de enzima e padrões de glicose. Após a fervura, 166 μΐ de sal de Rochelle 40% são adicionados e transferidos imediatamente para um banhomaria frio por, no máximo, 30 minutos. 0 tubo é misturado por inversão várias vezes de modo que a solução se separa do fundo do tubo a cada inversão. A mistura é medida a 575 nm em um espectrômetro. A absorbância é traduzida (corrigida, se necessário, por subtração do vazio) em produção de glicose durante a reação usando um gráfico de curva de glicose-padrão. A unidade de enzima é definida como a quantidade de enzima necessária para liberar 1,0 pmol por minuto 32.
Bgll (Trichodernia reesei) : Ensaios de betaglicosidase :
Substrato: celobiose, 2-15 mM em tampão de acetato de
52/85 sódio pH 4.8.
São feitas pelo menos duas diluições de cada amostra de enzima investigada. Uma diluição deve liberar ligeiramente mais e uma ligeiramente menos do que 1,0 mg (quantidade absoluta) de glicose na condições de reação. Adicionar 1,0 ml de diluição da enzima em tampão de acetato de sódio pH 4,8 a 1,0 ml de substrato de celobiose. Incubar a 50°C por 30-120 minutos. Interromper o ensaio por fervura em banho-maria por 5 minutos. Determinar a glicose liberada usando o método de glicose hexoquinase (Sigma). Uma unidade de enzima é definida como 1,0 pmol de glicose liberado por minuto da celobiose. Substrato: 2-15 mM de para-nitrofenil D-glicosídeo em tampão de acetato de sódio pH 4,8. Adicionar 0,3 ml de solução de enzima diluída a 0,6 ml de 50 mM de tampão de acetato de sódio e 0,3 ml de paranitrofenil D-glicosídeo. Realizar a reação a 50°C por 10 minutos. Interromper a reação com 1 M de Na2CO3. Medir por espectrofotometria o p-nitrofenol liberado a 410 nm usando p-nitrofenol como padrão. Construir a curva de calibração para p-nitrofenol na faixa de concentração de 0,02-0,1 mM. A unidade de enzima é definida como a quantidade de enzima necessária para liberar 1,0 pmol de p-nitrofenol por min por pNPG.
Xilanase
Endo-xilanases: A xilana é um dos componentes principais da fração de hemicelulose das paredes de células de plantas e é responsável por 20-30% de sua massa seca total. Diferentemente da celulose, o xilana é um polímero complexo que consiste em monômeros de xilose ligados em β1,4 substituídos com cadeias laterais. A hidrólise do
53/85 arcabouço do xilana é catalisada por endob-1,4-xilanases (EC 3.2.1.8) e β-D-xilosidases (EC 3.2.1.37) 61.
Endoxilanases são capazes de hidrolisar as ligações 1,4-β internas do arcabouço do xilana e, dessa forma, produzir vários xilo-oligômeros de comprimento variável. A hidrólise completa do xilana envolve endo-β-Ι,4-xilanase, βxilosidase, e várias enzimas acessórias, por exemplo, a-Larabinofuranosidase, α-glicuronidase, acetilxilana esterase e ácido ferúlico esterase 62,63 . Para a indústria de biocombustíveis, o inventor percebeu que as xilanases podem ser usadas para auxiliar na conversão de lignocelulose em açúcares fermentáveis (por exemplo, xilose). Além disso, a hidrólise de moléculas de xilana é uma etapa muito importante na hidrólise enzimática de hemicelulose e de materiais lignocelulósicos, pois gera uma maior acessibilidade para que as celulases atuem sobre a celulose exposta.
Ensaio de xilanase 64 (Baily 1989) :
Xyn2 (Trichoderma reesei)
Substrato: xilana oat spelt (1%); xilana birch wood (1%, ferver por 5 minutos até dissolvida).
gráfico-padrão de D-xilose (0,01 a 1 mg/ml de xilose) será preparado pela utilização do método de DNS.
Ensaio: A amostra de enzima é diluída em suspensão de xilana 1% com uma reação com volume total de até 2 ml. A seguir, a mistura é incubada por 30-120 minutos a 50°C. Após incubação, 2 ml de reagente de DNS são adicionados à mistura de reação, seguido por fervura por 5 minutos. A liberação de concentração xilose é medida espectrofotometricamente a 540 nm. A unidade de enzima é
54/85 calculada usando a fórmula-padrão e4.
Cutinase:
Cutinase do fungo fitopatogênico Fusarium solani pisi é um exemplo de uma pequena éster carboxílico hidrolase que liga propriedades funcionais entre lipases e esterases. A cutina, um poliéster composto por hidróxi e hidróxi epóxi ácidos graxos contendo 16 e 18 átomos de carbono, é o componente estrutural principal da barreira protetora que cobre a superfície das partes aéreas de plantas 65/66 . As cutinases não apenas degradam polímeros de cutina, mas também uma grande variedade de triacilgliceróis de cadeia curta e longa é rapidamente hidrolisada. A enzima pertence à família de serina hidrolases que contêm a denominada dobra α/β-hidrolase 67,68. A hidrólise de moléculas de cutina, lipase e triacilgliceróis que estão presentes em grande quantidade na casca de resíduos de cítricos dá uma grande acessibilidade para enzimas como pectinases, celulases e xilanases. Portanto, a cutinase é um componente enzimático importante na hidrólise enzimática da casca de cítricos para a produção de biocombustível.
Ensaio de cutinase 67,69: Substrato: p-nitrofenil butirato e p-nitrofenil palmitato (0,01% ou 10 mM) . A enzima é extraída de plantas transplastômicas em 100 mM de tampão de Tris-HCl (pH 7,0) e Triton X-100 0,03% será adicionado no momento do início do ensaio enzimático. As reações são realizadas por incubação por 10-15 min a 30°C em um tubo contendo 1 ml de substrato (100 mM Tris-HCl, pH 7, Triton X-100 0,03% e p-nitrofenol butirato 0,01% e várias quantidades de amostra de enzima (gelada). A liberação de p-nitrofenol é medida a 405 nm usando p55/85 nitrofenol como padrão. A atividade de fundo é subtraída da leitura de absorção, se necessário. Uma unidade de atividade enzimática foi definida como a quantidade que degrada 1 pmol de substrato por minuto sob condições padronizadas.
Mananase:
A mananase é usada na indústria de papel e de polpa, para o branqueamento enzimático de polpa de madeira mole, na indústria de detergente como um reforço para a remoção de manchas, na indústria do café para hidrólise de manana de café para reduzir a viscosidade de extratos de café, na indústria de moagem de óleo para aumentar o fluxo de óleo ou gás, na extração de óleo da carne do coco, na indústria têxtil para o processamento de fibras celulósicas e na indústria de aves para aumentar o valor nutricional de rações para aves 70.
Polissacarídeos da parede celular podem ser convertidos em açúcares fermentáveis por meio de hidrólise enzimática usando enzimas como, por exemplo, celulases e hemícelulases, e os açúcares fermentáveis assim obtidos podem ser usados para produzir etanol lignocelulósico. A mananase é uma hemicelulase. A hemicelulose é um grupo complexo de polímeros heterogêneos e representa uma das fontes principais de matéria orgânica renovável. Mananas são um dos principais grupos constituintes de hemicelulose e estão amplamente distribuídas em madeiras duras e madeiras mole, sementes de plantas leguminosas e no feijão. Hemiceluloses constituem até 25-30% do peso seco total da madeira. As hemiceluloses em madeiras mole são principalmente galactoglucomanana, contendo resíduos de
56/85 manose/glicose/galactose em uma proporção de 3:1:1 e glucomanana com resíduos de manose/glicose na proporção de 3:171. Mananases são endohidrolases que clivam aleatoriamente dentro da cadeia principal de 1,4-β-Ό manana de galactomanana, glucomanana, galactoglucomanana e manana. Mananases hidrolisam as ligações β-ϋ-1,4 manopiranosídeo em β-1,4 mananas. Os produtos principais obtidos durante a hidrólise de mananas por β-mananases são manobiose e manotriose. Enzimas adicionais, por exemplo, β-glicosidases e α-galactosidases, são necessárias para remover açúcares da cadeia lateral que estão anexadas em vários pontos em mananas. Uma grande variedade de bactérias, actinomicetos, leveduras e fungos sabidamente produzem mananase. Entre as bactérias, principalmente gram-positivas, incluindo várias espécies de Bacillus e de Clostridia e algumas cepas de bactérias gram-negativas, por exemplo, Vibrio e Bacteroides, também foram relatadas. O grupo de degradação de manana mais proeminente entre fungos pertence aos gêneros Aspergillus, Agaricus, Trichoderma e Sclerotium 70.
O procedimento de ensaio para determinação da atividade de mananase envolve a incubação do extrato de enzima bruto com o substrato (galactomanana de goma de alfarroba como substrato). Após a reação enzimática, os açúcares redutores liberados são quantificados, e a atividade enzimática é medida. A goma de alfarroba (0,5%) será dissolvida em tampão de citrato (pH 5,3) e aquecida até ferver; essa mistura é usada como o substrato. O extrato de enzima bruto é incubado com o substrato a 50°C por 5 minutos. Os açúcares redutores liberados na reação enzimática são testados por adição de reagente de ácido
57/85 dinitro salicílico em ebulição por 5 min, resfriamento e medida da absorbância a 54 0 nm 72.
Outro método ensaio envolve galactomanana de alfarroba (0,2%) como substrato em tampão de acetato de sódio (pH 5). O extrato de enzima bruto é incubado com o substrato a 40°C por 10 minutos. Os açúcares redutores liberados são medidos pelo método de Nelson-Somogyi, e a atividade enzimática é quantificada 73. Em um ensaio de difusão em gel, placas de gel são preparadas por dissolução de goma de alfarroba 0,05% (p/v) em tampão de citrato fosfato (pH 5,0), juntamente com Phytagar. 0 extrato de enzima bruto é transferido para as placas de gel e incubado por 24 horas. Os géis serão corados pela utilização de vermelho Congo. As zonas clareadas (halos) nas placas indicavam atividade de endo-beta-mananase 74.
Arabinofuranosidase 1 (ABF1)
ABF1 demonstrou ter vários usos potenciais. Larabinose é encontrada por muitos tecidos de plantas diferentes em pequenas quantidades, mas colocada estrategicamente como grupos laterais. ABF1 facilita a degradação dessas cadeias laterais e o entrecruzamento dentro da parede celular para funcionar sinergicamente com outras enzimas como, por exemplo, hemicelulases. Isso pode aumentar a disponibilidade de açúcares fermentáveis para a produção de biocombustível a partir de biomassa ou polpa e a produção de papel. Essa enzima pode aumentar a digestibilidade de rações para animais de criação, tem sido usada na clarificação de sucos de fruta e pode ajudar na aromatização de vinhos. Finalmente, ABF1 possui possibilidades como aditivo alimentício para diabéticos em
58/85 função do gosto doce e do efeito inibidor da digestão de sacarose 75.
ABF1 foi isolada do fungo T. reesei e expressa em Escherichia coli no plasmídeo pLD. A atividade dessa enzima é testada por meio do uso do substrato p-nitrofenil-a-Larabinofuranosídeo em 0,05 M de tampão de citrato incubado a 50°C por minutos com extratos brutos de enzima de plantas ou
E.
coli. A reação é interrompida com 1 M de
Na2CO3, p-nitrofenol resultante é medido por espectrofotômetro a 400 nm e comparado com o padrão positivo (p-nitrofenol ou
ABF, ambos disponíveis comercialmente) para determinar a quantidade. Estudos de pH e temperatura ótimos são realizados com o mesmo substrato e medidos da mesma forma 76. Sabidamente, a atividade dessa enzima é inibida por certos íons metálicos como, por exemplo, Cu2+' Hg2+, detergentes e muitos agentes quelantes e redutores 75.
Lignina peroxidase (LipJ)
A enzima lignina peroxidase, comumente conhecida como LipJ, permanece inédita e desejável para o avanço da produção de enzimas para biocombustível por meio de tabaco transplastômico. A expressão de LipJ deve expandir os espectros de fontes de biomassa exploráveis por hidrólise da lignina não comestível e porções ricas em celulose de biomassa como, por exemplo, milho, cana de açúcar e trigo. Fontes previamente excluídas como fontes para biocombustível em função de seu teor elevado de lignina, por exemplo, restos de tábuas de madeira, lascas de madeira, cascas de frutas e vegetais preparados comercialmente, poderíam ser hidrolisadas com LipJ. LipJ
59/85 também avança na produção de biocombustíveis por ablação das estruturas intricadas de lignina dentro de materiais de plantas dando acesso a substratos de biomassa mais valiosos que fornecem produtos comerciais, químicos e farmacêuticos valiosos. Esses produtos ainda possuem rendimento limitado, por causa da natureza protetora da lignina que os circunda dentro das fontes de biomassa.
LipJ foi isolada do DNA genômico de Mycobacterium tuberculosis, expressa em um plasmídeo funcional tanto em cloroplastos quanto em E. coli. Três cultivares de tabaco transplastômico estão expressando esse vetor na rodada primária de seleção e aguardam confirmação de expressão em cloroplasto. Foram planejados ensaios de proteína em E. coli para análise qualitativa e quantitativa da expressão de LipJ, que é otimizada para cloroplasto derivado de LipJ.
Lipase (LipY)
Lipase Y (LipY), de Mycobacterium tuberculosis, é uma enzima hidrossolúvel que catalisa a hidrólise de ligações éster e triacilgliceróis de cadeia longa, o que a torna um candidato ideal para a produção de biocombustível. LipY é uma proteína da membrana para Mycobacterium tuberculosis e estudos já demonstraram que ocorre uma resposta humoral quando LipY é combinada com o soro de pacientes com tuberculose; portanto, LipY tem o benefício adicional de ser uma vacina potencial para tuberculose 77.
Um ensaio simples para determinação da atividade do gene clonado é um ensaio em placa que envolve o corante fluorescente rodamina B e um extrato bruto de células lisadas. Se o gene estiver integrado adequadamente e a proteína dobrada corretamente, o ensaio exibirá uma cor
60/85 laranja quando iluminado sob um comprimento de onda de luz específico 80. Outro ensaio mede a liberação de pnitrofenol quando p-nitrofenilestearato é incubado em várias concentrações de E. coli ou extrato de célula de planta 81.
Exemplo 11: Expressão de enzimas de degradação de plantas em cultivares comerciais
Cloroplastos de tabaco foram transformados por bombardeamento com microprojéteis (transformação biolística), como descrito anteriormente. A integração do transgene foi confirmada por análise por PCR usando os iniciadores utilizados em estudos prévios. Análise southern-blot foi realizada para confirmar homoplasmia.
Sementes de tabaco (Nicotiana tabacum var. Petit
Havana/LAMD/TN90) foram germinadas assepticamente em meio
MSO em placas de Petri. As mudas germinadas foram transferidas para caixas púrpuras contendo meio MSO. As folhas no estágio de 3-7 folhas de crescimento de planta foram cortadas e colocadas abaxial viradas para cima em um papel de filtro Whatman em meio RMOP em placas de Petri (100 x 15 mm) para bombardeamento. Microprojéteis de ouro (0,6 pm) foram revestidos com DNA de plasmídeo (vetor de expressão de tabaco em cloroplasto) e a transformação biolística mediada foi realizada com o dispositivo biolístico PDSIOOO/He (Bio-Rad) como publicado. Após bombardeamento, as folhas foram incubadas no escuro por 48 horas para se recuperar do dano. Após 48 horas no escuro, as folhas bombardeadas de Petit Havana (cultivar experimental) ou LAMD e TN90 (cultivar comercial) foram cortadas em pedaços de 5 mm2 e colocadas em placas (com o
61/85 lado bombardeado em contato com o meio) contendo RMOP com
500, 150 e 200 mg/1 de espectinomicina, respectivamente, para a primeira rodada de seleção. Após 4-5 semanas, aparecerão brotos resistentes, enquanto células não transformadas morrerão. Os brotos resistentes serão transferidos para novas placas com RMOP-Espectinomicina e submetidos a rodadas subsequentes de seleção. Os supostos brotos transplastômicos foram confirmados por PCR e análise Southern. A expressão de enzimas de degradação da parede celular foi confirmada por seus respectivos ensaios, e para aquelas para as quais houvesse anticorpo disponível, a análise western-blot foi realizada.
Os cultivares comerciais geraram 40 toneladas métricas de biomassa de folhas frescas, em contraste com 2,2 tons no cultivar experimental Petit Havana. Os cultivares comerciais geraram biomassa 18 vezes mais do que o cultivar experimental (Cramer e cols., 1999). LAMD-609 é um híbrido com baixo teor de nicotina produzido por retrocruzamento de uma variedade do tipo Maryland, MD-609, com uma variedade burley que produz baixo teor de nicotina, LA Burley 21 (Collins e cols., 1974); Tennessee 90 (TN 90) é um cultivar comercial usado por Philip Morris (Lancaster Laboratories, PA) . Ambos os cultivares experimentais LAMD e TN 90 foram transformados com genes que codificam enzimas de degradação de biomassa. Embora seja mais desafiador transformar esses tivemos sucesso cultivares do que o cultivar experimental,
| na transformação de | ambos os | cultivares | comerciais | com | |
| diversos | genes que | codificam | enzimas de | degradação | de |
| biomassa | pectato | liases, | celulases, | xilanases | e |
endoglucanases. As linhagens transplastômicas de cultivares
62/85 comerciais eram homoplásmicas, férteis, e as atividades das enzimas expressas eram similares às do cultivar experimental, exceto que seu rendimento de biomassa foi bem maior do que Havana. A Tabela 8 mostra enzimas que foram introduzidas com sucesso em plantas, expressas e testadas quanto à atividade em cultivares experimentais e comerciais.
PCR foi feita usando DNA isolado de material de folha de plantas de controle e supostamente transgênicas a fim de distinguir transformantes de cloroplasto verdadeiros de transformantes nucleares ou mutantes. Foram preparadas duas reações de PCR separadas, uma reação verificou a integração de gene marcador selecionável no genoma do cloroplasto e a segunda verificou a integração do cassete de expressão transgênica. A fim de testar a integração do cloroplasto dos transgenes, um iniciador (3M) se destinará ao gene aadA enquanto o outro (3P) se destinará ao genoma nativo do cloroplasto. Nenhum produto de PCR foi obtido com plantas transgênicas nucleares ou mutantes usando esse conjunto de iniciadores. Essa seleção é importante para eliminar mutantes e transformantes nucleares. A fim de realizar a análise por PCR em plantas transgênicas, DNA total de plantas não bombardeadas e transgênicas foi isolado como descrito pelo mini kit de planta DNeasy (Qiagen). A integração do cassete de expressão transgênica foi testada usando o par de iniciadores 5P/2M. O iniciador 5P se destina ao gene aadA e 2M ao trnA e, portanto, o produto de PCR mostrou se o gene de interesse havia sido introduzido no genoma do cloroplasto por meio do processo de recombinação homóloga. Uma estratégia similar foi usada com
63/85 sucesso por PI lab para confirmar a integração no cloroplasto de vários genes estranhos. Os pedaços de folha de brotos PCR-positivos foram ainda selecionados para uma segunda rodada a fim de obter homoplasmia.
Foram feitos Southern-blots para testar homoplasmia. Há vários milhares de cópias do genoma do cloroplasto presentes em cada célula de planta. Quando são inseridos genes estranhos no genoma do cloroplasto, nem todos os cloroplastos irão integrar DNA estranho resultando em heteroplasmia. Para assegurar que somente o genoma transformado exista em plantas transgênicas (homoplasmia), o processo de seleção foi continuado. A fim de confirmar homoplasmia ao final do ciclo de seleção, DNA total de plantas transgênicas foi sondado com as sequências flanqueadoras de cloroplasto marcadas radioativamente (o fragmento trnl-trnA) usadas para recombinação
Caso estejam presentes genomas do tipo homóloga.
selvagem (heteroplasmia), será observado o tamanho do fragmento nativo junto com genomas transformados. A presença de um fragmento grande dentro das sequências flanqueadoras e a ausência do pequeno fragmento nativo devem confirmar homoplasmia.
A Figura 6 mostra a geração de cultivares comerciais transplastômicos de tabaco. (A) Enraizamento de broto de CelD LAMD. (B) plantas transplastômicas de CelD LAMD que crescem na estufa. (C) plantas transplastômicas de CelD LAMD que mostram floração normal. (D) transformante primário de CelD TN90 . (E) Segunda rodada de regeneração para CelD TN90. (F) Enraizamento de PelB TN90. (G-I)
Primeira, segunda e terceira rodadas de regeneração para
64/85
PelB LAMD. (J) Enraizamento de broto de PelD LAMD. (K) plantas transplastômicas PelD LAMD que crescem em estufa.
(L) Planta transplastômica PelD LAMD que mostra floração normal. (M) Enraizamento de broto egl LAMD. (N) Planta transplastômica egl LAMD que cresce em potes.
A Figura 7 mostra confirmação de homoplasmia por southern-blots usando sonda flanqueadora de tabaco. (A) CelD LAMD. (B) PelB LAMD. (C) PelB TN90. (D) PelD LAMD e (E) egl LAMD (UT: Planta não transformada; Números: Linhagens transplastômicas e B: Vazio). A Figura 8 mostra atividade enzimática de pectato liase B e D em cultivares de tabaco Petit Havana, TN90 e LAMD. (A) PelB. (B) PelD. Observação: o material de folha usado para a análise da atividade enzimática para cultivares de tabaco TN90 e LAMD foi colhido de plantas in vitro, enquanto o material de folha para Petit Havana é da estufa. Na medida em que o transgene é controlado por psbA, com a luz e elementos reguladores do desenvolvimento, espera-se que os níveis de expressão em cultivares comerciais sejam maiores quando transferidos para a estufa.
65/85

ω «J ΰ Η Ü (D
Ο ra

Ο taJ ra

<D k

<D
<u τ>
<u oo aJ rH
0)
Λ <CJ
E-<
| Saúde da planta | Normal | Normal | Normal | |
| 2 2 3 : s 8 « s 5 U U Ό d ΓτΊ w Φ Λ | £ •H ω | Sim | £ -H ω | |
| i H « s 3 “ o .p -u (D o β 0 “ X Ό ° w Μ (D | Sim | £ •H ω | ||
| Material congelado (g) | 400 | 250 | ||
| N° de plantas | Sementes germinadas T0 | Sementes germinadas T0 | 4 clones | |
| Em qual estágio | Sementes colhidas | Sementes colhidas | 2a rodada de seleção | |
| Estado em Southern | Homoplasmia | Homoplasmia | Não verificado | |
| PCRpositivo | Sim, Petit Havana (PH) | Q £ •H ω | Sim (TN90) | |
| Nome do gene | celD |
CD (U U a d) £ CD
CD (D U C (D £ a>
66/85
| Normal | rd 0 S | Normal | Normal | Normal | Normal | |
| Sim | ε Ή ω | ε •H ω | Sim | Sim | Sim | |
| ε •Η ω | Sim | ε •H ω | ||||
| 009 | 340 | |||||
| germinadas ΤΟ | 18 plantas | 30 plantas | Sementes germinadas ΤΟ | Sementes germinadas TO | σι | σι |
| colhidas | Enraizamento | Pronta para produção em estufa | Sementes colhidas | Sementes colhidas | Pronta para produção em estufa | | Pronta para produção em estufa |
| Homoplasmia | Homoplasmia | Homoplasmia | Homoplasmia | Homoplasmia | Homoplasmia | |
| Sim (LAMD) | Sim (TN90) | Sim (PH) | Sim (LAMD) | w cu ε •H ω | Sim (PH) | |
| pelD | c i—1 Φ α | Egl |
67/85
| Normal | Normal | Normal | Normal | Folhas finas | Normal | Folhas estão finas | Normal |
| g •H ω | Em progresso | Sim | g •H ω | Em progresso | Em progresso | Em | |
| Em progresso | g H ω | Sim | Sim | g Ή ω | Sim | ||
| CO | 20 | 3 clones | 20 | 20 | 15 | 20 | |
| Pronta para produção em estufa | Enraizamento | 2a rodada de seleção | Pronta para produção em estufa | Enraizamento | Pronta para produção em estufa | Enraizamento | Enraizamento |
| Homoplasmia | Em progresso | Em progresso | Homoplasmia | Homoplasmia | 1 Homoplasmia | Em progresso | Heteroplasmia |
| Q g •H ω | K λ g •H | o σ> 3 H g •rl ω | K g •H ω | Sim (PH) | Sim (PH) | Sim (PH) | K cu g •H ω |
| Egll | Xyn2 | Swol | Bgll | Cutinase | ceio |
68/85
| Normal | ||||||
| progresso | Em progresso | |||||
| £ •H ω | Sim | Sim | £ -H ω | Sim | ||
| 5 clones | ||||||
| 2a rodada de seleção | Em meio de seleção RMOP | Em meio de seleção RMOP | Em meio de seleção RMOP | Em meio de seleção RMOP | Em meio de seleção RMOP | |
| Em progresso | 1 1 í 1 1 | 1 1 1 1 1 | 1 1 1 | 1 1 1 | 1 1 1 1 | |
| Avaliação (LAMD) | Bombardeada em todos os cultivares | Bombardeada em todos os cultivares | Bombardeada em todos os cultivares | Bombardeada em todos os cultivares | Bombardeada em todos os cultivares | |
| ϊ—1 â | a •H ι—1 | lipj | Manl | Abfl |
69/85
As revelações dos documentos de patente, publicações e referências citados, incluindo aqueles citados nas Tabelas II-VII, são aqui incorporados em sua totalidade na medida em que não sejam inconsistentes com os ensinamentos aqui apresentados. Deve-se entender que os exemplos e as modalidades aqui descritas têm finalidade apenas ilustrativa, e que várias modificações ou alterações à luz destes serão sugeridas por aqueles habilitados na técnica e devem ser incluídas no espírito e abrangência deste pedido.
LISTA DE REFERÊNCIAS PARA OS EXEMPLOS 1-8
1. Robertson, G.P. e cols. AGRICULTURE: Sustainable Biofuels Redux. Science 322, 49-50 (2008).
2. Sticklen, M.B. Plant genetic engineering for biofuel production: towards affordable cellulosic ethanol. Nat. Rev. Genet. 9, 433-443 (2008) .
3. Merino, S.T. e Cherry, J. Progress and Challenges in Enzyme Development for Biomass Utilization in Advances in Biochemical Engineering/Biotechnology 95-120 (Springer Berlin/Heidelberg, 2007).
4. Wyman, C.E. e cols. Coordinated development of leading biomass pretreatment technologies. Bioresour. Technol. 96, 1959-1966 (2005) .
5. Grohmann, K. , Baldwin E.A., Buslig, B.S. e Ingram L.O Fermentation of galacturonic acid and other sugars in orange peel hydrolysates by the ethanologenic strain of Escherichia coli. Biotechnology Letters 16, 281-286 (1994) .
6. Himmel, M.E. e cols. Advanced bioethanol production technologies: a prospective. Em ACS Symposium 666, 2-45. 1997. American Chemical Society Washington,
70/85
DC. Tipo de Ref.: Conference Proceeding.
7. Himmel, M.E., Ruth, M.F. e Wyman, C.E. Cellulase for commodity products from cellulosic biomass. Current Opinion in Biotechnology 10, 358-364 (1999).
8. Taylor II, L.E. e cols. Heterologous expression of glycosyl hydrolases in planta: a new departure for biofuels. Trends in Biotechnology 26, 413-424 (2008).
9. Ziegelhoffer, T. , Will, J. e Ustin-Phillips, S. Expression of bacterial cellulase genes in transgenic alfalfa (Medicago sativa L.), potato (Solanum tuberosum L.) and tobacco (Nicotiana tabacum L.). Molecular Breeding 5, 309-318 (1999) .
10. Kawazu, T. e cols. Expression of a bacterial endoglucanase gene in tobacco increases digestibility of its cell wall fibers. Journal of Bioscience and Bioengineering 88, 421-425 (1999).
11. Dai, Z., Hooker, B.S., Anderson, D.B. e Thomas, S.R. Improved plant-based production of El endoglucanase using potato: expression optimization and tissue targeting. Molecular Breeding 6, 277-285 (2000).
12. Montalvo-Rodriguez, R. e cols. Autohydrolysis of plant polysaccharides using transgenic hyperthermophilic enzymes. Biotechnology and Bioengineering 70, 151-159 (2000).
13. Xu, X. e cols. Expression of a bacterial I+amylase gene in transgenic rice seeds. Transgenic Research 17, 645-650 (2008) .
14. Martinez, D. e cols. Genome sequencing and analysis of the biomass-degrading fungus Trichoderma reesei (syn. Hypocrea jecorina). Nat. Biotech. 26, 553-560
71/85 (2008) .
15. Rubin, E.M. Genomics of cellulosic biofuels. Nature 454, 841-845 (2008).
16. Verma, D. e Daniell, H. Chloroplast vector systems for biotechnology applications. Plant Physiol. 145, 1129-1143 (2007) .
17. Daniell, H. , Lee, S.B., Panchal, T. e Wiebe, P.O. Expression of the native cholera toxin B subunit gene and assembly as functional oligomers in transgenic tobacco chloroplasts. Journal of Molecular Biology 311, 1.0011.009 (2001).
18. De Cosa, B., Moar, W. , Lee SB. , Miller, M. e Daniell, H. Overexpression of the Bt cry2Aa2 operon in chloroplasts leads to formation of insecticidal crystals. Nat. Biotechnol. 19, 71-74 (2001).
19. Lee, S.B. e cols. Accumulation of trehalose within transgenic chloroplasts confers drought tolerance. Molecular Breeding 11, 1-13 (2003).
20. Singh, N.D., Li, M. , Lee, S.B., Schnell, D. e Daniell, H. Arabidopsis Tic40 Expression in Tobacco Chloroplasts Results in Massive Proliferation of the Inner Envelope Membrane and Upregulation of Associated Proteins. Plant Cell tpc (2008) .
21. Daniell, H . Transgene containment by maternal inheritance: Effective or elusive? Proceedings of the National Academy of Sciences 104, 6.879-6.880 (2007) .
22. Ruf, S., Karcher, D. e Bock, R. Determining the transgene containment levei provided by chloroplast transformation. Proceedings of the National Academy of Sciences 104, 6.998-7.002 (2007).
72/85
23. Svab, Z. e Maliga, P. Exceptional transmission of plastids and mitochondria from the transplastomic pollen parent and its impact on transgene containment. Proceedings of the National Academy of Sciences 104, 7.0037.008 (2007).
24. Gray, B.N., Ahner, B.A. e Hanson, M.R. High-level bacterial cellulose accumulation in chloroplast-transformed tobacco mediated by downstream box fusions. Biotechnology and Bioengineering xxx, xxx (2008).
25. Leelavathi, S., Gupta, N. , Maiti, S., Ghosh, A. e Siva Reddy, V. Overproduction of an alkali- and thermostable xylanase in tobacco chloroplasts and efficient recovery of the enzyme. Molecular Breeding 11, 59-67 (2003).
26. Yu, L.X. e cols. Expression of thermostable microbial cellulases in the chloroplasts of nicotine-free tobacco. Journal of Biotechnology 131, 362-369 (2007).
27. Brixey, P.J., Guda, C. e Daniell, H. The chloroplast psbA promoter is more efficient in Escherichia coli than the T7 promoter for hyperexpression of a foreign protein. Biotechnology Letters 19, 395-400 (1997).
28. Daniell, H., Ruiz, O.N. e Dhingra, A. Chloroplast Genetic Engineering to Improve Agronomic Traits. Methods Mol. Biol. 286, 111-138 (2005).
29. Verma, D., Samson, N.P., Koya, V. e Daniell, Η. A protocol for expression of foreign genes in chloroplasts. Nat. Protocols 3, 739-758 (2008).
30. Guo, W., Gonzalez-Candeias, L. e Kolattukudy, P.E. Cloning of a novel constitutively expressed pectate lyase gene pelB from Fusarium solani f. sp. pisi (Nectria
73/85 haematococca, mating type VI) and characterization of the gene product expressed in Pichia pastoris. J. Bacteriol.
177, 7.070-7.077 (1995).
31. Miller, G.L. Use of Dinitrosalicylic Acid Reagent for Determination of Reducing Sugar. Analytical Chemistry 31, 426-428 (1959).
32. Ghose, T.K. Measurement of cellulase activities. Pure and Applied Chemistry 59, 257-268 (1987).
33. Arlen P.A. e cols. Field production and functional evaluation of chloroplast-derived interferonalpha2b. Plant Biotech. J5, 511-525 (2007).
33a. Cramer, C.L., Boothe, J.G. e Oishi, K.K. Transgenic plants for therapeutic proteins: linking upstream and downstream strategies. Curr. Top. Microbiol. Immunol. 240, 95-118 (1999).
34. Ruhlman, T.F., Ahangari, R.F., Devine, A.F., Samsam, M.F. e Daniell, H. Expression of cholera toxin Bproinsulin fusion protein in lettuce and tobacco chloroplasts-oral administration protects against development of insulitis in non-obese diabetic mice. Plant Biotech. J. 5, 495-510 (2007) .
35. Bally, J. e cols. Both the stroma and thylakoid lumen of tobacco chloroplasts are competent for the formation of disulphide bonds in recombinant proteins. Plant Biotech. J. 6, 46-61 (2008).
36. Chauvaux, S. e cols. Calcium-binding affinity and calcium-enhanced activity of Clostridium thermocellum endoglucanase D. Biochem. J. 265, 261-265 (1990).
37. Zverlov, V.V., Velikodvorskaya, G.A. e Schwarz, W.H. A newly described cellulosomal cellobiohydrolase,
74/85
CelO, from Clostridium thermocellum: investigation of the exo-mode of hydrolysis, and binding capacity to crystalline cellulose. Microbiology 148, 247-255 (2002).
38. Irwin DC, Spezio, M. , Walker LP e Wilson, D.B. Activity studies of eight purified cellulases: Specificity, synergism, and binding domain effects. Biotechnology and Bioengineering 42, 1.002-1.013 (1993).
39. Zhou, S. e Ingram, L.O. Synergistic Hydrolysis of Carboxymethyl Cellulose and Acid-Swollen Cellulose by Two Endoglucanases (CelZ and CelY) from Erwinia chrysanthemi. J. Bacteriol. 182, 5.676-5.682 (2000).
40. Gusakov AV e cols. Design of highly efficient cellulase mixtures for enzymatic hydrolysis of cellulose. Biotechnology and Bioengineering 97, 1.028-1.038 (2007) .
41. Yapo, B.M., Lerouge, P. , Thibault, J.F. e Ralet, M.C. Pectins from citrus peel cell walls contain homogalacturonans homogenous with respect to molar mass, rhamnogalacturonan I and rhamnogalacturonan II. Carbohydrate Polymers 69, 426-435 (2007).
42. Rosgaard, L., Pedersen S e Meyer, A.S. Comparison of different pretreatment strategies for enzymatic hydrolysis of wheat and barley straw. Appl. Biochem. Biotechnol. 143, 284-296 (2007).
43. Selig, M.J., Knoshaug, E.P., Adney, W.S., Himmel,
M.E. e Decker, S.R. Synergistic enhancement of cellobiohydrolase performance on pretreated corn stover by addition of xylanase and esterase activities.
Technology 99, 4.997-5.005 (2008).
44. Rosgaard, L. e cols. Evaluation
Trichoderma reesei cellulase mixtures on
Bioresource of minimal differently
75/85 pretreated Barley straw substrates. Biotechnol. Prog. 23,
1.270-1.276 (2007).
45. Guo, W., González-Candeias, L. e Kolattukudy, P.E. Identification of a NovelpelDGene Expressed Uniquely in Planta by Fusarium solanif. sp. Pisi (Nectria haematococca, Mating Type VI) and Characterization of Its Protein Product as an Endo-Pectate Lyase. Archives of Biochemistry and Biophysics 332, 305-312 (1996) .
46. Soliday, C.L., Flurkey, W.H., Okita, T.W. e Kolattukudy, P.E. Cloning and structure determination of cDNA for cutinase, an enzyme involved in fungai penetration of plants. Proceedings of the National Academy of Sciences of the United States of América 81, 3.939-3.943 (1984).
47. Daniell, H., Datta, R., Varma, S., Gray, S. e Lee,
S.B. Containment of herbicide resistance through genetic engineering of the chloroplast genome. Nat. Biotech. 16, 345-348 (1998).
48. Kumar, S. & Daniell, H. Engineering the Chloroplast Genome for Hyperexpression of Human Therapeutic Proteins and Vaccine Antigens em Recombinant Gene Expression 365- 383 2004).
49. Crawford, M.S. e Kolattukudy, P.E. Pectate lyase from Fusarium solani f. sp. pisi: Purification, characterization, in vitro translation of the mRNA, and involvement in pathogenicity. Archives of Biochemistry and Biophysics 258, 196-205 (1987) .
50. González-Candeias, L. e Kolattukudy, P.E. Isolation and analysis of a novel inducible pectate lyase gene from the phytopathogenic fungus Fusarium solani f. sp. pisi (Nectria haematococca, mating population VI). J.
76/85
Bacteriol. 174, 6.343-6.349 (1992).
LISTA DE REFERÊNCIAS PARA OS EXEMPLOS 10-11
LISTA DE REFERÊNCIAS
1. Robertson, G.P. e cols. AGRICULTURE: Sustainable Biofuels Redux. Science 322, 49-50 (2008).
2. Sticklen, M.B. Plant genetic engineering for biofuel production: towards affordable cellulosic ethanol. Nat. Rev. Genet. 3, 433-443 (2008).
3. Merino, S.T. e Cherry, J. Progress and Challenges in Enzyme Development for Biomass Utilization in Advances Em Biochemical Engineering/Biotechnology 95-120 (Springer Berlin/Heidelberg, 2007).
4. Wyman, C.E. e cols. Coordinated development of leading biomass pretreatment technologies. Bioresour. Technol. 96, 1.959-1.966 (2005).
5. Grohmann, K., Baldwin, E.A., Buslig, B.S. e Ingram, L.O. Fermentation of galacturonic acid and other sugars in orange peel hydrolysates by the ethanologenic strain of Escherichia coli. Biotechnology Letters 16, 281-286 (1994) .
6. Himmel, M.E. e cols. Advanced bioethanol production technologies: a prospective. Em ACS Symposium 666, 2-45. 1997. American Chemical Society Washington, DC. Tipo de Ref.: Conference Proceeding.
7. Himmel, M.E., Ruth, M.F. e Wyman, C.E. Cellulase for commodity products from cellulosic biomass. Current Opinion in Biotechnology 10, 358-364 (1999).
8. Taylor II, L.E. e cols. Heterologous expression of glycosyl hydrolases in planta: a new departure for biofuels. Trends in Biotechnology 26, 413-424 (2008).
77/85
9. Ziegelhoffer, T. , Will, J. e ustin-Phillips, S. Expression of bacterial cellulase genes in transgenic alfalfa (Medicago sativa L.), potato (Solanum tuberosum L.) and tobacco (Nicotiana tabacum L.). Molecular Breeding 5, 309-318 (1999).
10. Kawazu, T. e cols. Expression of a bacterial endoglucanase gene in tobacco increases digestibility of its cell wall f ibers . Journal of Bioscience and Bioengineering 88, 421-425 (1999).
11. Dai, Z., Hooker, B.S., Anderson, D.B. e Thomas, S.R. Improved plant-based production of El endoglucanase using potato: expression optimization and tissue targeting. Molecular Breeding 6, 277-285 (2000).
12. Montalvo-Rodriguez, R. e cols. Autohydrolysis of plant polysaccharides using transgenic hyperthermophilic enzymes. Biotechnology and Bioengineering 70, 151-159 (2000).
13. Xu, X. e cols. Expression of a bacterial aamylase gene in transgenic rice seeds. Transgenic Research 17, 645-650 (2008) .
14. Martinez, D. e cols. Genome sequencing and analysis of the biomass-degrading fungus Trichoderma reesei (syn. Hypocrea jecorina). Nat. Biotech. 26, 553-560 (2008).
15. Rubin, E.M. Genomics of cellulosic biofuels. Nature 454, 841-845 (2008).
16. Verma, D. e Daniell, H. Chloroplast vector systems for biotechnology applications. Plant Physiol. 145, 1.129-1.143 (2007).
17. Daniell, H., Lee, S.B., Panchal, T. e Wiebe, P.O.
78/85
Expression of the native cholera toxin B subunit gene and assembly as functional oligomers in transgenic tobacco chloroplasts. Journal of Molecular Biology 311, 1.0011.009 (2001).
18. De Cosa, B., Moar, W. , Lee, S.B., Miller, M. e Daniell, H. Overexpression of the Bt cry2Aa2 operon in chloroplasts leads to formation of insecticidal crystals. Nat. Biotechnol. 19, 71-74 (2001).
19. Lee, S.B. e cols. Accumulation of trehalose within transgenic chloroplasts confers drought tolerance. Molecular Breeding 11, 1-13 (2003).
20. Singh, N.D., Li, M. , Lee, S.B., Schnell, D. e Daniell, H. Arabidopsis Tic40 Expression in Tobacco Chloroplasts Results in Massive Proliferation of the Inner Envelope Membrane and Upregulation of Associated Proteins. Plant Cell 20, 3.405-3.417 (2008).
21. H. Daniell, S. Kumar e N. Duformantel (2005)
Breakthrough in chloroplast genetic engineering of agronomically important crops.
Trends in Biotechnology,
23: 238-245.
22. Daniell, H. Transgene containment by maternal inheritance: Effective or elusive? Proceedings of the
National Academy of Sciences 104, 6.879-6.880 (2007).
23. H. Daniell (2002) Molecular strategies for gene containment in transgenic crops. Nature Biotechnology 20: 581-587.
24. Gray, B.N., e cols., High-levei bacterial cellulase accumulation in chloroplast-transformed tobacco mediated by downstream box fusions. Biotechnology and Bioengineering 102, 1.045-1.054 (2008).
79/85
25. Leelavathi, S., Gupta e Siva Reddy, V. Overproduction of an alkali- and thermo-stable xylanase in tobacco chloroplasts and efficient recovery of the enzyme. Molecular Breeding 11, 59-67 (2003).
26. Yu, L.X. e cols. Expression of thermostable microbial cellulases in the chloroplasts of nicotine-free tobacco. Journal of Biotechnology 131, 362-369 (2007).
27. Brixey, P.J., Guda, C. e Daniell, H. The chloroplast psbA promoter is more efficient in Escherichia coli than the T7 promoter for hyperexpression of a foreign protein. Biotechnology Letters 19, 395-400 (1997).
28. Daniell, H., Ruiz, O.N. e Dhingra, A. Chloroplast Genetic Engineering to Improve Agronomic Traits. Methods Mol. Biol. 286, 111-138 (2005).
29. Verma, D., Samson, N.P., Koya, V. e Daniell, Η. A protocol for expression of foreign genes in chloroplasts. Nat. Protocols 3, 739-758 (2008).
30. Guo, W., Gonzalez-Candeias, L. e Kolattukudy, P.E. Cloning of a novel constitutively expressed pectate lyase gene pelB from Fusarium solani f. sp. pisi (Nectria haematococca, mating type VI) and characterization of the gene product expressed in Pichia pastoris. J. Bacteriol. 177, 7070-7077 (1995).
31. Miller, G.L. Use of Dinitrosalicylic Acid Reagent for Determination of Reducing Sugar. Analytical Chemistry 31, 426-428 (1959).
32. Ghose, T.K. Measurement of cellulase activities. Pure and Applied Chemistry 59, 257-268 (1987).
33. Cramer, C.L., Boothe, J.G. e Oishi, K.K. Transgenic plants for therapeutic proteins: linking
80/85 upstream and downstream strategies. Curr. Top. Microbiol.
Immunol. 240, 95-118 (1999).
34. Collins G.B., Legg P.D., Kasperbauer MC. Tobacco hybrid LAMD-609. CropSci. 14, 72-80 (1974).
35. Arlen P.A. e cols. Field production and functional evaluation of chloroplast-derived interferonalpha2b. Plant Biotech. J. 5, 511-525 (2007).
36. Ruhlman, T.F., Ahangari, R.F., Devine, A.F., Samsam, M.F. e Daniell, H. Expression of cholera toxin Bproinsulin fusion protein in lettuce and tobacco chloroplasts-oral administration protects against development of insulitis in non-obese diabetic mice. Plant Biotech. J. 5, 495-510 (2007) .
37. Bally, J. e cols. Both the stroma and thylakoid lumen of tobacco chloroplasts are competent for the formation of disulphide bonds in recombinant proteins. Plant Biotech. J. 6, 46-61 (2008) .
38. Chauvaux, S. e cols. Calcium-binding affinity and calcium-enhanced activity of Clostridium thermocellum endoglucanase D. Biochem. J. 265, 261-265 (1990).
39. Zverlov, V.V., Velikodvorskaya, G.A. e Schwarz, W.H. A newly described cellulosomal cellobiohydrolase, CelO, from Clostridium thermocellum: investigation of the exo-mode of hydrolysis, and binding capacity to crystalline cellulose. Microbiology 148, 247-255 (2002).
40. Irwin, D.C., Spezio, M. , Walker, L.P. e Wilson, D.B. Activity studies of eight purified cellulases: Specificity, synergism, and binding domain effects. Biotechnology and Bioengineering 42, 1.002-1.013 (1993).
41. Zhou, S. & Ingram, L.O. Synergistic Hydrolysis of
81/85
Carboxymethyl Cellulose and Acid-Swollen Cellulose by Two
Endoglucanases (CelZ and CelY) from Erwinia chrysanthemi.
J. Bacteriol. 182, 5.676-5.682 (2000).
42. Gusakov, A.V. e cols. Design of highly efficient cellulase mixtures for enzymatic hydrolysis of cellulose. Biotechnology and Bioengineering 97, 1.028-1.038 (2007).
43. Yapo, B.M., Lerouge, P., Thibault, J.F. e Ralet, M.C. Pectins from citrus peel cell walls contain homogalacturonans homogenous with respect to molar mass, rhamnogalacturonan I and rhamnogalacturonan II . Carbohydrate Polymers 69, 426-435 (2007).
44. Rosgaard, L., Pedersen, S. e Meyer, A.S. Comparison of different pretreatment strategies for enzymatic hydrolysis of wheat and barley straw. Appl. Biochem. Biotechnol. 143, 284-296 (2007).
45. Selig, M.J., Knoshaug, E.P., Adney, W.S., Himmel, M.E. e Decker, S.R. Synergistic enhancement of cellobiohydrolase performance on pretreated corn stover by addition of xylanase and esterase activities. Bioresource Technology 99, 4.997-5.005 (2008).
46. Rosgaard, L. e cols. Evaluation of minimal Trichoderma reesei cellulase mixtures on differently pretreated Barley straw substrates. Biotechnol. Prog. 23, 1.270-1.276 (2007).
47. Crawford, M.S. e Kolattukudy, P.E. Pectate lyase from Fusarium solani f. sp. pisi: Purification, characterization, in vitro translation of the mRNA, and involvement in pathogenicity. Archives of Biochemistry and Biophysics 258, 196-205 (1987).
48. Gonzalez-Candelas, L. e Kolattukudy, P.E.
82/85
Isolation and analysis of a novel inducible pectate lyase gene from the phytopathogenic fungus Fusarium solani f. sp.
pisi (Nectria haematococca, mating population VI). J.
Bacteriol. 174, 6.343-6.349 (1992).
49. Holtzapple, M.T. Cellulose. Em: Macrae R, Robinson R.K., Saddler M.J., editors. Encyclopedia of food science food technology and nutrition. Londres: Academic Press; 1993. p. 758-67.
50. Jarvis, M. Cellulose stacks up . Science 426, 611-2 (2003).
51. Zhang, Y.H.P. e Lynd, L.R. Toward an aggregated understanding of enzymatic hydrolysis of cellulose: noncomplexed cellulase systems. Biotechnol. Bioeng. 88, 797-824 (2004) .
52. Berner, R.A. The long-term carbon cycle, fóssil fuels and atmospheric composition. Nature 426, 323-6 (2003) .
53. Demain, A.L., Newcomb, M. e Wu, J.H.D. Cellulase, clostridia, and ethanol. Microbiol. Mol. Biol. Rev. 69, 124-54 (2005) .
54. 0'Sullivan, A.C. Cellulose: the structure slowly unravels. Cellulose 4, 173-207 (1997).
55. Lynd, L.R., Weimer, P.J. e van Zyl, W.H. Pretorius IS. Microbial cellulose utilization: fundamentais and biotechnology. Microbiol. Mol. Biol. Rev. 66, 506-77 (2002) .
56. Wyman, C.E. Potential synergies and challenges in refining cellulosic biomass to fuels, chemicals, and Power. Biotechnol. Frog. 19, 254-262 (2003).
57. Bayer, E.A., Lamed, R. e Himmel, M.E. The
83/85 potential of cellulases and cellulosomes for cellulosic waste management. Curr. Opin. Biotechnol. 18, 237-245 (2007) .
58. Knowles, J., Lehtovaara, P. e Teeri, T. Cellulase families and their genes. Trends Biotechnol. 5, 255-261 (1987).
59. Himmel, M.E., Adney, W.S., Baker, J.O., Nieves, R.A. , Thomas, S.R. Cellulases: structure, function and applications. Em: Wyman C.E., editor. Handbook on Bioethanol. 144-61 (1993).
60. Zhang, Y-H.P., Himmel, M.E. e Mielenz, J.R. Outlook for cellulase improvement: Sreening and selection strategies. Biotechnol. Adv. 24, 452-481 (2006).
61. Biely, P. Microbial xylanolytic systems, Trends Biotechnology 3, 286-290 (1985).
62. Tenkanen, M, Puls, J. e Potanen, K. Two major xylanases of Trichoderma reesei, Enzyme and Microbial Technology 14: 566-574 (1992).
63. Polizeli, M.L.T.M., Rizzatti, A.C.S. e Monti, R. Xylanases from fungi: properties and industrial applications. Applied Microbiology and Biotechnology; 67, 577-591 (2005) .
64. Baily, M.J. e Poulanen, K. Production of xylanases by strains of Aspergillus. Appl. Microbiol. Biotechnol. 30, 5-10 (1989).
65. Kolattukudy, P.E. Biopolyester Membranes of Plants: Cutin and Suberin. 208, 990-1000 (1980).
66. Kolattukudy, P.E. Polyesters in higher plants. Adv. Biochem. Eng. Biotechnol. 71, 1-49 (2001).
67. Kolattukudy, P.E. Detection of an N-terminal
84/85 glucuronamide linkage in proteins. Methods Enzymol. 106,
210-7 (1984).
68. Egmond, M.R. e De Vlieg, J. Fusarium solani pisi cutinase. Biochimie 82, 1.015-1.021 (2000).
69. Sieber, P., Schorderet, M. , Ryser, U. , Buchala, A., Kolattukudy, P. , Métraux, J.P. e Nawrath, C. Transgenic Arabidopsis plants expressing a fungai cutinase show alterations in the structure and properties of the cuticle and postgenital organ fusions. Plant Cell 12, 72138 (2000) .
70. Dhawan, S e Kaur, J. Microbial Mannanases: An Overview of Production and Applications, Criticai Reviews in Biotechnology, 27, 197-216 (2007).
71. Moreira, L.R.S. e Filho, E.X.F. An overview of mannan structure and mannan-degrading enzyme systems. Appl. Microbiol. Biotechnol. 79, 165-178 (2008).
72. Stalbrand, e cols., Purification and characterization of two (3-Mannanases from Trichoderma reesei, Journal of Biotechnology, 29, 229-242 (1993).
73. Mc Cleary, β-D Mannanase. Methods in enzymology, 160, 596- 610 (1988).
74. Downie e cols., A new assay for quantifying endo β-D mannanase activity using congo red dye. Phytochemistry. 36, 829-835, (1994).
75. Numan, M.T. Alpha-L-Arabinofuranosidases: the potential applications in biotechnology. Journal of Industrial Microbiology and Biotechnology 33, 247-260 (2006).
76. Poutanen, K. An alpha-L-arabinofuranosidase of Trichoderma Reesei. Journal of Biotechnology 7, 271-282
85/85 (1988) .
77. Arora, D., e cols. Comparison of two assay procedures for lignin peroxidase. Enzyme and Microbial Technology 28, 602-605 (2001).
78. Archibald, F.S. A New Assay for Lignin-Type
Peroxidases Employing the Dye Azure B. Applied and Environmental Microbiology, 58, 3.110-3.116 (1992).
79. Mishra, K. C. e cols., Functional role of the PE domain and immunogenicity of the Mycobacterium tuberculosis triacylglycerol hydrolase LipY. Infect. Immun. 16, 127-140 (2008).
80. Kouker, G., Jaeger, K.E. Specific and Sensitive Plate Assay for Bacterial Lipases. Applied and Environmental Microbiology 53, 211-213 (1987) .
81. Deb, C. , Daniel. J. e Kolattukudy, P.E., A Novel
Lipase Belonging to the Hormone-sensitive Lipase Family Induced under Starvation to Utilize Stored Triacylglycerol in Mycobacterium tuberculosis. The Journal of Biological Chemistry 281, 3.866-3.875 (2006).
Claims (4)
- REIVINDICAÇÕES1. Método de degradação de uma amostra de biomassa de planta de modo a liberar açúcares fermentáveis nessa amostra, o método caracterizado por compreender as etapas5 de:i) obter um coquetel de degradação de plantas preparado a partir de material vegetal moído compreendendo proteínas recombinantes expressas em plastídios de pelo menos uma planta transplastômica, as referidas proteínas10 recombinantes consistindo em swolenina, endoglucanase CelD, endoglucanase CelO, beta-glicosidase, xilanase, acetil xilana esterase, enzimas pectato liase PelA, pectato liase PelB e pectato liase PelD, o referido coquetel compreendendo um tampão e, opcionalmente, um ou mais de um 15 extrato de células bacterianas compreendendo um composto de degradação de planta e uma lipase; e ii) incubar o referido coquetel de degradação de plantas com a referida amostra de biomassa entre 30°C e 50°C em um pH entre 6 a 10 para liberar 100% de açúcares20 fermentáveis da referida biomassa.
- 2. Método, de acordo com a reivindicação 1, caracterizado pelo fato de que o referido coquetel compreende ainda pelo menos um extrato celular bacteriano.
- 3. Método, de acordo com a reivindicação 1,25 caracterizado pelo fato de que a referida amostra de biomassa de planta compreende grãos e/ou resíduos de grãos, beterraba, cana de açúcar, gramas, biomassa à base de madeira, frutas e/ou resíduos de frutas, ou uma combinação destes.3 0 4. Método, de acordo com a reivindicação 3,Petição 870190011705, de 04/02/2019, pág. 12/15 caracterizado pelo fato de que a referida biomassa de2/4 planta é milho, trigo, cevada ou cítricos, ou resíduos deles obtidos.5. Método, de acordo com a reivindicação3, caracterizado pelo fato de que a referida biomassa de planta é capim-elefante.6. Método, de acordo com a reivindicação3, caracterizado pelo fato de que a referida biomassa de planta é cana de açúcar.7. Método, de acordo com a reivindicação3, caracterizado pelo fato de que a referida biomassa de planta é beterraba.8. Método, de acordo com a reivindicação1, caracterizado pelo fato de que o referido coquetel de degradação de plantas ainda compreende rubisco.9. Coquetel de degradação de plantas útil para degradação de uma biomassa de planta, o referido coquetel caracterizado por compreender enzima de degradação de plantas expressas recombinantemente em plastídios de células de plantas, em que as referidas enzimas consistem em endonuclease CelD, endonuclease CelO, beta-glicosidase, xilanase, acetil xilana esterase, pectato liase PelA, pectato liase PelB e pectato liase PelD, o referido coquetel compreendendo ainda swolenina, um tampão, e opcionalmente inibidores de protease, a referida swolenina e as referidas enzimas de degradação de plantas no referido coquetel de degradação de plantas atuando sinergicamente para liberar 100% de açúcares fermentáveis produzidos a partir da referida amostra de biomassa.10. Coquetel, de acordo com a reivindicação 9,Petição 870190011705, de 04/02/2019, pág. 13/153/4 caracterizado pelo fato de que o referido tampão é um tampão de acetato de sódio e/ou um tampão de Tris-HCl.11. Material de planta homogeneizado, caracterizado por compreender enzimas recombinantemente expressas produzidas em plastídios de plantas superiores, em que as referidas enzimas recombinantemente expressas consistem em endogluconase CelD, endoglucanase CelO, beta-glicosidase, acetil xilana esterase, pectato lisase PelA, pectato liase PelB e pectato liase PelD; o referido material de planta opcionalmente compreendendo rubisco e/ou swolenina, o referido material compreendendo ainda inibidores de protease e azida de sódio.12. Material de planta homogeneizado, de acordo com a reivindicação 11, caracterizado pelo fato de que a enzima compreende mais de 0,1 por cento de proteína total no referido material de planta em pó.13. Material de planta homogeneizado, de acordo com a reivindicação 11, caracterizado pelo fato de que o referido material de planta compreende rubisco.14. Método, de acordo com a reivindicação 1, caracterizado pelo fato de que o referido material de planta está homogeneizado.15. Material de planta, de acordo com a reivindicação 11, caracterizado pelo fato de que a proporção de enzima para rubisco é de 99:1 a 1:99; 50:1 a 1:50; 25:1 a 1:25; 10:1 a 1:10; 5:1 a 1:5; ou 2:1 a 1:2.16. Coquetel de enzimas de degradação de plantas útil na digestão de uma amostra de biomassa à base de madeira, caracterizado por consistir em extratos de proteínas recombinantes expressas em cloroplastos, as referidasPetição 870190011705, de 04/02/2019, pág. 14/15
- 4/4 proteínas recombinantes consistindo em endogluconase CelD, endoglucanase CelO, beta-glicosidase, xilanase, swolenina, acetil xilana esterase, pectato lisase PelA, pectato liase PelB e pectato liase PelD.17. Coquetel, de acordo com a reivindicação 9, caracterizado pelo fato de que o referido coquetel compreende um coquetel de inibidor de protease e azida de sódio.18. Método, de acordo com a reivindicação 1, caracterizado pelo fato de que o referido tampão é um tampão de acetato de sódio ou um tampão de Tris-HCl.
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US3253608P | 2008-02-29 | 2008-02-29 | |
| US61/032,536 | 2008-02-29 | ||
| PCT/US2009/035753 WO2009108941A2 (en) | 2008-02-29 | 2009-03-02 | Production and use of plant degrading materials |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| BRPI0908879A2 BRPI0908879A2 (pt) | 2018-05-22 |
| BRPI0908879B1 true BRPI0908879B1 (pt) | 2019-07-09 |
Family
ID=41016754
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| BRPI0908879-2A BRPI0908879B1 (pt) | 2008-02-29 | 2009-03-02 | Método de degradação de planta, coquetel de degradação de plantas, material de planta homogeneizado e coquetel de enzimas |
Country Status (7)
| Country | Link |
|---|---|
| US (1) | US10676751B2 (pt) |
| EP (1) | EP2260105B1 (pt) |
| CN (1) | CN102016041A (pt) |
| BR (1) | BRPI0908879B1 (pt) |
| CA (1) | CA2716806A1 (pt) |
| IN (1) | IN2010MU01835A (pt) |
| WO (1) | WO2009108941A2 (pt) |
Families Citing this family (125)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US7676953B2 (en) * | 2006-12-29 | 2010-03-16 | Signature Control Systems, Inc. | Calibration and metering methods for wood kiln moisture measurement |
| US10689633B2 (en) | 2008-02-29 | 2020-06-23 | The Trustees Of The University Of Pennsylvania | Expression of β-mannanase in chloroplasts and its utilization in lignocellulosic woody biomass hydrolysis |
| WO2009149283A1 (en) * | 2008-06-06 | 2009-12-10 | Danisco Us Inc. | Saccharification enzyme composition |
| WO2009149419A2 (en) | 2008-06-06 | 2009-12-10 | Danisco Us Inc. | Variant alpha-amylases from bacillus subtilis and methods of use, thereof |
| CA2754580C (en) | 2009-03-17 | 2014-06-17 | Codexis, Inc. | Variant endoglucanases and related polynucleotides |
| WO2010120557A1 (en) * | 2009-03-31 | 2010-10-21 | Codexis, Inc. | Improved endoglucanases |
| JP5932648B2 (ja) | 2009-09-23 | 2016-06-15 | ダニスコ・ユーエス・インク | 新規なグリコシルヒドロラーゼ酵素及びその用途 |
| WO2011048852A1 (ja) * | 2009-10-19 | 2011-04-28 | バイオアイ株式会社 | ペクチンリアーゼ、ペクチンリアーゼ遺伝子、酵素調製物、及び植物組織の単細胞化方法 |
| BR122018013596B1 (pt) * | 2009-10-26 | 2024-01-30 | Universiteit Stellenbosch (Also Known As Stellenbosch University) | Células hospedeiras de saccharomyces cerevisiae bem como processos para hidrólise de um substrato celulósico e para fermentação de celulose |
| MX2012005152A (es) | 2009-11-06 | 2012-06-12 | Novozymes Inc | Composiciones para sacrificacion de material celulosico. |
| EP2496692B1 (en) | 2009-11-06 | 2016-03-16 | Novozymes, Inc. | Polypeptides having xylanase activity and polynucleotides encoding same |
| EP2599862B1 (en) * | 2009-11-20 | 2017-08-02 | Danisco US Inc. | Beta-glucosidase variants with improved properties |
| US8916366B2 (en) * | 2009-11-20 | 2014-12-23 | Codexis, Inc. | Multi-cellulase enzyme compositions for hydrolysis of cellulosic biomass |
| CN102712880A (zh) * | 2009-12-21 | 2012-10-03 | 丹尼斯科美国公司 | 含有嗜热脂肪地芽孢杆菌脂肪酶的洗涤剂组合物及其使用方法 |
| PH12012500999A1 (en) * | 2009-12-23 | 2013-02-11 | Danisco Us Inc | Methods for improving the efficiency of simultaneous saccharification and fermentation reactions |
| BR112012017292B1 (pt) * | 2010-01-13 | 2021-05-18 | Basf Se | variante de mananase, molécula de ácido nucleico, método para a preparação da mananase modificada, composição e uso da mananase modificada |
| US9133448B2 (en) | 2010-02-11 | 2015-09-15 | Dsm Ip Assets B.V. | Polypeptide having cellobiohydrolase activity and uses thereof |
| EP2357227B1 (en) * | 2010-02-11 | 2015-07-15 | Süd-Chemie IP GmbH & Co. KG | Optimized cellulase enzymes |
| WO2011128712A1 (en) * | 2010-04-12 | 2011-10-20 | Stellenbosch University | Biofuel production |
| CN103124783A (zh) | 2010-06-03 | 2013-05-29 | 马斯科马公司 | 表达用于使用淀粉和纤维素进行联合生物加工的糖分解酶的酵母 |
| DK2588494T3 (en) | 2010-06-29 | 2018-06-14 | Dsm Ip Assets Bv | POLYPEPTIDE WITH BETA-GLUCOSIDASE ACTIVITY AND APPLICATIONS THEREOF |
| CA2803513A1 (en) * | 2010-06-29 | 2012-01-05 | Margot Elisabeth Francoise Schooneveld-Bergmans | Polypeptide having acetyl xylan esterase activity and uses thereof |
| WO2012021883A2 (en) * | 2010-08-13 | 2012-02-16 | Dyadic International, Inc. | Novel fungal enzymes |
| CN103080306B (zh) * | 2010-08-20 | 2015-02-18 | 科德克希思公司 | 糖苷水解酶61家族蛋白在纤维素加工中的用途 |
| AR083708A1 (es) * | 2010-11-03 | 2013-03-13 | Yissum Res Dev Co | Plantas transgenicas con rendimientos de sacarificacion altos y metodos para generarlas |
| WO2012068167A1 (en) * | 2010-11-15 | 2012-05-24 | Edeniq, Inc. | Use of manganese peroxidase for enzymatic hydrolysis of lignocellulosic material |
| WO2012088165A1 (en) * | 2010-12-21 | 2012-06-28 | The Board Of Trustees Of The University Of Illinois | Thermostable c. bescii enzymes |
| MX337913B (es) | 2011-01-26 | 2016-03-28 | Novozymes As | Polipeptidos que tienen actividad celobiohidrolasa y polinucleotidos que codifican los mismos. |
| RU2013146341A (ru) * | 2011-03-17 | 2015-04-27 | ДАНИСКО ЮЭс ИНК | Композиции целлюлазы и способы их применения для улучшенного превращения лигноцеллюлозной биомассы в ферментируемые сахара |
| MX2013010512A (es) | 2011-03-17 | 2013-10-07 | Danisco Inc | Metodo para reducir la viscosidad en un proceso de sacarificacion. |
| MX2013010510A (es) * | 2011-03-17 | 2013-10-07 | Danisco Inc | Enzimas glocosil hidrolasa y usos de estas para la hidrolisis de biomasa. |
| US8765425B2 (en) | 2011-03-23 | 2014-07-01 | Butamax Advanced Biofuels Llc | In situ expression of lipase for enzymatic production of alcohol esters during fermentation |
| US8759044B2 (en) | 2011-03-23 | 2014-06-24 | Butamax Advanced Biofuels Llc | In situ expression of lipase for enzymatic production of alcohol esters during fermentation |
| FI123867B (fi) * | 2011-04-06 | 2013-11-29 | Teknologian Tutkimuskeskus Vtt | Uusia kutinaaseja, niiden tuottaminen ja käytöt |
| KR101415165B1 (ko) * | 2011-07-15 | 2014-07-23 | 한국생명공학연구원 | 셀룰로시마이크로비움 속 hy-13 균주로부터 생산된 신규한 만난아제 |
| US8859227B2 (en) | 2011-08-04 | 2014-10-14 | Novozymes, Inc. | Polypeptides having xylanase activity and polynucleotides encoding same |
| CA2847236A1 (en) | 2011-09-09 | 2013-03-14 | Novozymes A/S | Polypeptides having alpha-amylase activity and polynucleotides encoding same |
| JP6084617B2 (ja) * | 2011-09-14 | 2017-02-22 | デュポン ニュートリション バイオサイエンシーズ エーピーエス | 酵素 |
| DK2766476T3 (en) | 2011-10-11 | 2017-08-28 | Novozymes As | GLUCOAMYLASE VARIETIES AND POLYNUCLEOTIDES CODING THEM |
| IN2014CN03467A (pt) | 2011-10-11 | 2015-10-16 | Novozymes North America Inc | |
| EP2771469A4 (en) * | 2011-10-24 | 2015-04-08 | Univ Central Florida Res Found | CONCENTRATED PLASTIC-EXPRESSED MYCOBACTERIUM TUBERCULOSE VACCINE FUEL ESTATES ESAT-6 AND MTB72F AT CHOLERATOXIN B SUB-UNIT |
| AR088515A1 (es) * | 2011-10-25 | 2014-06-18 | Pioneer Hi Bred Int | Metodos para alterar la composicion de la pared celular vegetal para obtener produccion de biocombustible y digestibilidad de silaje mejoradas |
| US9562222B2 (en) | 2011-11-18 | 2017-02-07 | Novozymes A/S | Polypeptides having beta-glucosidase activity, beta-xylosidase activity, or beta-glucosidase and beta-xylosidase activity and polynucleotides encoding same |
| US8709776B2 (en) * | 2011-11-18 | 2014-04-29 | Novozymes A/S | Polypeptides having beta-glucosidase activity and beta-xylosidase activity and polynucleotides encoding same |
| WO2013121573A1 (ja) * | 2012-02-17 | 2013-08-22 | 住友商事株式会社 | ソフトバイオマスの分解方法 |
| EP2825658A4 (en) * | 2012-03-14 | 2015-12-16 | Swetree Technologies Ab | GENETICALLY MODIFIED PLANTS HAVING IMPROVED SACCHARIFICATION PROPERTIES |
| WO2013160248A2 (en) * | 2012-04-23 | 2013-10-31 | Novozymes A/S | Polypeptides having alpha-glucuronidase activity and polynucleotides encoding same |
| WO2013166312A1 (en) * | 2012-05-02 | 2013-11-07 | The Trustees Of Columbia University In The City Of New York | Biofuel production enzymes and uses thereof |
| CN104755616B (zh) | 2012-08-03 | 2020-11-06 | 杜邦营养生物科学有限公司 | 用于溶解含有阿拉伯木聚糖的物质的木聚糖酶 |
| EA201590312A1 (ru) * | 2012-08-03 | 2015-10-30 | ДюПон НЬЮТРИШН БАЙОСАЙЕНСИЗ АпС | Ферменты |
| JP6644547B2 (ja) * | 2012-08-16 | 2020-02-12 | バングラデシュ ジュート リサーチ インスティテュートBangladesh Jute Research Institute | Macrophominaphaseolina由来のペクチン分解酵素およびその使用 |
| CN104919043A (zh) | 2012-08-16 | 2015-09-16 | 孟加拉朱特研究所 | 来自菜豆壳球孢菌的木质素降解酶及其用途 |
| CA2888757A1 (en) * | 2012-10-31 | 2014-05-08 | Danisco Us Inc. | Compositions and methods of use |
| MX2015007234A (es) | 2012-12-12 | 2015-10-29 | Danisco Us Inc | Variantes de celobiohidrolasas. |
| US8778641B1 (en) * | 2013-02-12 | 2014-07-15 | Novozymes Inc. | Polypeptides having cellobiohydrolase activity and polynucleotides encoding same |
| US8778640B1 (en) * | 2013-02-12 | 2014-07-15 | Novozymes Inc. | Polypeptides having cellobiohydrolase activity and polynucleotides encoding same |
| US8993275B2 (en) * | 2013-02-12 | 2015-03-31 | Novozymes, Inc. | Polypeptides having cellobiohydrolase activity and polynucleotides encoding same |
| US8778639B1 (en) * | 2013-02-12 | 2014-07-15 | Novozymes Inc. | Polypeptides having endoglucanase activity and polynucleotides encoding same |
| US8771993B1 (en) * | 2013-02-12 | 2014-07-08 | Novozymes A/S | Polypeptides having endoglucanse activity and polynucleotides encoding same |
| US8759041B1 (en) * | 2013-02-12 | 2014-06-24 | Novozymes Inc. | Polypeptides having xylanase activity and polynucleotides encoding same |
| US8771994B1 (en) * | 2013-02-12 | 2014-07-08 | Novozymes Inc. | Polypeptides having cellobiohydrolase activity and polynucleotides encoding same |
| US9617574B2 (en) | 2013-03-15 | 2017-04-11 | Auburn University | Efficient process for producing saccharides and ethanol from a biomass feedstock |
| WO2014202621A1 (en) * | 2013-06-20 | 2014-12-24 | Dsm Ip Assets B.V. | Carbohydrate degrading polypeptide and uses thereof |
| CN105339492A (zh) * | 2013-07-09 | 2016-02-17 | 诺维信公司 | 具有脂肪酶活性的多肽和编码它们的多核苷酸 |
| US11981942B2 (en) | 2013-07-23 | 2024-05-14 | International N&H Denmark Aps | Xylanases for solubilizing arabinoxylan-containing material |
| US9744542B2 (en) | 2013-07-29 | 2017-08-29 | Apeel Technology, Inc. | Agricultural skin grafting |
| WO2015091746A1 (en) | 2013-12-20 | 2015-06-25 | Novozymes A/S | Compositions and processes for treatment with lipases |
| WO2015144821A1 (en) * | 2014-03-27 | 2015-10-01 | Novozymes A/S | Polypeptides having alpha-l-arabinofuranosidase activity and polynucleotides encoding same |
| EP3125962B1 (en) * | 2014-04-01 | 2019-08-21 | LifeCell Corporation | Microbial enzymes for reduction of alpha-galactose from collagen based tissue |
| GB201409047D0 (en) * | 2014-05-21 | 2014-07-02 | Cellucomp Ltd | Cellulose microfibrils |
| CN105076686A (zh) * | 2014-05-21 | 2015-11-25 | 中国科学院过程工程研究所 | 一种利用大蒜叶作为添加剂生产生物抗菌饲料的方法 |
| WO2015187935A1 (en) * | 2014-06-06 | 2015-12-10 | Novozymes A/S | Enzyme compositions and uses thereof |
| US10258065B2 (en) | 2014-07-10 | 2019-04-16 | Novozymes A/S | Polypeptides having xylanase activity and polynucleotides encoding same |
| ES2712635T3 (es) * | 2014-07-10 | 2019-05-14 | Novozymes As | Proceso para producir etanol a partir de almidón usando una xilanasa GH5 |
| DK3166419T3 (da) * | 2014-07-11 | 2019-12-09 | Danisco Us Inc | Paenibacillus-og bacillus spp. mannanaser |
| EP3201330A1 (en) * | 2014-09-30 | 2017-08-09 | Danisco US Inc. | Compositions comprising beta mannanase and methods of use |
| DK3234143T5 (da) | 2014-12-19 | 2024-10-14 | Novozymes As | Sammensætninger omfattende polypeptider med xylanaseaktivitet og polypeptider med arabinofuranosidaseaktivitet |
| WO2016135173A1 (en) * | 2015-02-25 | 2016-09-01 | Carbios | Hemicellulose-degrading compositions and uses thereof |
| EP3298024B1 (en) | 2015-05-20 | 2020-04-01 | Apeel Technology, Inc. | Plant extract compositions and methods of preparation thereof |
| CN104894087A (zh) * | 2015-05-22 | 2015-09-09 | 江南大学 | 一种高效水解农林生物质原料纤维素酶制剂的复配定制方法 |
| DK3313193T3 (da) * | 2015-06-26 | 2021-06-07 | Novozymes As | Fremgangsmåde til fremstilling af en kaffeekstrakt |
| US11332728B2 (en) * | 2015-09-04 | 2022-05-17 | Lallemand Hungary Liquidity Management Llc | Yeast strains for the expression and secretion of heterologous proteins at high temperatures |
| EP3349589B1 (en) | 2015-09-16 | 2022-12-14 | Apeel Technology, Inc. | Method for forming a protective coating by applying fatty acid glyceride compounds to a surface |
| CN108603183B (zh) | 2015-11-05 | 2023-11-03 | 丹尼斯科美国公司 | 类芽孢杆菌属物种和芽孢杆菌属物种甘露聚糖酶 |
| CN109072208A (zh) | 2015-11-05 | 2018-12-21 | 丹尼斯科美国公司 | 类芽孢杆菌属物种甘露聚糖酶 |
| CN108368527B (zh) | 2015-11-26 | 2023-07-18 | 诺维信公司 | 研磨方法 |
| ES2797697T3 (es) | 2015-12-10 | 2020-12-03 | Apeel Tech Inc | Proceso para despolimerizar cutina |
| EP3192866A1 (en) * | 2016-01-15 | 2017-07-19 | CIC nanoGUNE - Asociación Centro de Investigación Cooperativa en Nanociencias | Endocellulases and uses thereof |
| WO2017132281A1 (en) | 2016-01-26 | 2017-08-03 | Apeel Technology, Inc. | Method for preparing and preserving sanitized products |
| DE102016201637A1 (de) * | 2016-02-03 | 2017-08-03 | Henkel Ag & Co. Kgaa | Verbesserte Waschleistung durch eine alpha-Amylase aus Bacillus cereus |
| EP3462904B1 (en) | 2016-05-24 | 2024-12-18 | Novozymes A/S | Gastric stable polypeptides having alpha-galactosidase activity and polynucleotides encoding same |
| WO2017202966A1 (en) | 2016-05-24 | 2017-11-30 | Novozymes A/S | Polypeptides having alpha-galactosidase activity and polynucleotides encoding same |
| JP7194678B2 (ja) | 2016-11-17 | 2022-12-22 | アピール テクノロジー,インコーポレイテッド | 植物抽出物から形成される組成物及びその調製方法 |
| CN109641973B (zh) | 2016-11-25 | 2022-03-08 | 诺维信公司 | Gh10木聚糖酶、gh62阿拉伯呋喃糖苷酶、研磨方法以及其他应用 |
| US10954280B2 (en) | 2016-11-27 | 2021-03-23 | Triton Algae Innovations, Inc. | Method of purification of recombinant osteopontin from micro algae |
| GB201620658D0 (en) * | 2016-12-05 | 2017-01-18 | Univ Stellenbosch | Recombinant yeast and use thereof |
| DE102017202034A1 (de) * | 2017-02-09 | 2018-08-09 | Henkel Ag & Co. Kgaa | Lipasen mit erhöhter Thermostabilität |
| DK3385377T3 (da) * | 2017-04-05 | 2021-12-06 | Ab Enzymes Oy | Bakteriemannanaser |
| EP3385361B1 (en) * | 2017-04-05 | 2019-03-27 | Henkel AG & Co. KGaA | Detergent compositions comprising bacterial mannanases |
| EP3622064B1 (en) * | 2017-05-08 | 2025-05-14 | Novozymes A/S | Mannanase variants and polynucleotides encoding same |
| EP3502126A1 (en) | 2017-12-19 | 2019-06-26 | CIC nanoGUNE - Asociación Centro de Investigación Cooperativa en Nanociencias | Ancestral cellulases and uses thereof |
| US11692192B2 (en) | 2018-02-23 | 2023-07-04 | Biocapital Holdings, Llc | Anti-microbial and UV-protective extracts and methods of making and using thereof |
| CA3093378A1 (en) | 2018-03-09 | 2019-09-12 | Danisco Us Inc | Glucoamylases and methods of use thereof |
| EP3778625A4 (en) * | 2018-04-05 | 2022-02-09 | Godo Shusei Co., Ltd. | ENZYME DERIVED FROM PAENIBACILLUS PABULI FOR THE PRODUCTION OF GALACTOOLIGOSACCHARIDE AND PROCESS FOR THE PRODUCTION OF GALACTOOLIGOSACCHARIDE |
| CN110819633A (zh) * | 2018-08-09 | 2020-02-21 | 南京农业大学 | 一种胡萝卜ABA应答元件结合蛋白基因DcABF3的序列及其应用 |
| CN108977421B (zh) * | 2018-08-17 | 2021-04-13 | 中国科学院青岛生物能源与过程研究所 | 用于催化木质纤维素糖化的全菌酶制剂 |
| EP3841206A4 (en) * | 2018-08-22 | 2022-06-08 | The Trustees of the University of Pennsylvania | Compositions and methods for producing enzymes useful in industrial and food stuff applications |
| EP3833731A1 (en) * | 2018-08-30 | 2021-06-16 | Danisco US Inc. | Compositions comprising a lipolytic enzyme variant and methods of use thereof |
| US12245605B2 (en) | 2018-09-05 | 2025-03-11 | Apeel Technology, Inc. | Compounds and formulations for protective coatings |
| CN113056476A (zh) | 2018-10-03 | 2021-06-29 | 诺维信公司 | 具有α-甘露聚糖降解活性的多肽以及编码它们的多核苷酸 |
| CN109385416B (zh) * | 2018-10-09 | 2021-03-26 | 中国农业科学院北京畜牧兽医研究所 | 果胶酸裂解酶pl1w及其基因和应用 |
| WO2020089703A1 (en) * | 2018-10-29 | 2020-05-07 | Roberto Bassi | Transgenic microalgae for the production of plant cell wall degrading enzymes having heat-stable cellulolytic activity |
| US10563185B1 (en) * | 2019-03-25 | 2020-02-18 | Dongguan APAC Biotechnology Co., Ltd. | Beta-glucosidase having improved enzymatic activity |
| EP3760714A1 (en) * | 2019-07-02 | 2021-01-06 | AB Enzymes Oy | Improved mannanase variants |
| WO2021078839A1 (en) | 2019-10-22 | 2021-04-29 | Novozymes A/S | Animal feed composition |
| JP7578707B2 (ja) | 2020-03-04 | 2024-11-06 | アピール テクノロジー,インコーポレイテッド | 被覆された農産物及び対応する方法 |
| MX2023004343A (es) | 2020-10-30 | 2023-05-08 | Apeel Tech Inc | Composiciones y metodos de preparacion de las mismas. |
| CA3199315A1 (en) * | 2020-11-02 | 2022-05-05 | Novozymes A/S | Glucoamylase variants and polynucleotides encoding same |
| CN118159138A (zh) | 2021-09-08 | 2024-06-07 | 阿比尔技术公司 | 用于保护性涂层的化合物和制剂 |
| CN114561303B (zh) * | 2022-02-14 | 2023-11-17 | 大连理工大学 | 一株分泌高性能纤维素酶的里氏木霉工程菌株及其应用 |
| US20250311734A1 (en) | 2022-05-14 | 2025-10-09 | Novozymes A/S | Compositions and Methods for Preventing, Treating, Suppressing and/or Eliminatting Phytopathogenic Infestations and Infections |
| EP4389864A1 (en) * | 2022-12-20 | 2024-06-26 | Basf Se | Cutinases |
| CN116218820B (zh) * | 2023-02-27 | 2025-08-29 | 广东溢多利生物科技股份有限公司 | 木聚糖酶突变体及其应用 |
| CN118048346B (zh) * | 2024-04-15 | 2024-06-28 | 北京科为博生物科技有限公司 | 一种热稳定性提高的酶突变体及其基因与应用 |
| CN121874280A (zh) * | 2026-03-19 | 2026-04-17 | 浙江博崤生物制药有限公司 | 一种脂肪酶在s-氟比洛芬催化合成中的用途及方法 |
Family Cites Families (13)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US6326470B1 (en) * | 1997-04-15 | 2001-12-04 | The Penn State Research Foundation | Enhancement of accessibility of cellulose by expansins |
| WO1998011235A2 (en) | 1996-09-12 | 1998-03-19 | Novartis Ag | Transgenic plants expressing cellulolytic enzymes |
| US6818803B1 (en) * | 1997-06-26 | 2004-11-16 | Wisconsin Alumni Research Foundation | Transgenic plants as an alternative source of lignocellulosic-degrading enzymes |
| NZ502277A (en) * | 1997-07-11 | 2002-02-01 | Genencor Int | Swollenin protein, encoding DNA sequences and use in detergents, fodder and paper production |
| US20030204864A1 (en) | 2001-02-28 | 2003-10-30 | Henry Daniell | Pharmaceutical proteins, human therapeutics, human serum albumin, insulin, native cholera toxic b submitted on transgenic plastids |
| US6013860A (en) | 1998-07-24 | 2000-01-11 | Calgene Llc | Expression of enzymes involved in cellulose modification |
| US20070192900A1 (en) | 2006-02-14 | 2007-08-16 | Board Of Trustees Of Michigan State University | Production of beta-glucosidase, hemicellulase and ligninase in E1 and FLC-cellulase-transgenic plants |
| WO2002034926A2 (en) * | 2000-10-20 | 2002-05-02 | Michigan State University | Transgenic plants containing ligninase and cellulase which degrade lignin and cellulose to fermentable sugars |
| GB0118935D0 (en) * | 2001-08-02 | 2001-09-26 | Icgeb | Xylanase production |
| CN102634540B (zh) | 2002-07-03 | 2015-04-08 | 中佛罗里达大学 | 经由体细胞胚胎发生的质体遗传工程 |
| EP1735454B1 (en) * | 2004-03-25 | 2017-05-10 | Novozymes, Inc. | Methods for degrading or converting plant cell wall polysaccharides |
| US20090221039A1 (en) * | 2006-04-06 | 2009-09-03 | Institut Francias Du Petrole | Fusion proteins between plant cell-wall degrading enzymes and a swollenin, and their uses |
| US7923236B2 (en) * | 2007-08-02 | 2011-04-12 | Dyadic International (Usa), Inc. | Fungal enzymes |
-
2009
- 2009-03-02 CA CA2716806A patent/CA2716806A1/en not_active Abandoned
- 2009-03-02 CN CN2009801152988A patent/CN102016041A/zh active Pending
- 2009-03-02 EP EP09716115.2A patent/EP2260105B1/en active Active
- 2009-03-02 US US12/396,382 patent/US10676751B2/en active Active
- 2009-03-02 WO PCT/US2009/035753 patent/WO2009108941A2/en not_active Ceased
- 2009-03-02 BR BRPI0908879-2A patent/BRPI0908879B1/pt active IP Right Grant
-
2010
- 2010-08-27 IN IN1835MU2010 patent/IN2010MU01835A/en unknown
Also Published As
| Publication number | Publication date |
|---|---|
| BRPI0908879A2 (pt) | 2018-05-22 |
| WO2009108941A3 (en) | 2010-01-21 |
| CN102016041A (zh) | 2011-04-13 |
| EP2260105A4 (en) | 2011-04-20 |
| EP2260105B1 (en) | 2016-08-17 |
| EP2260105A2 (en) | 2010-12-15 |
| CA2716806A1 (en) | 2009-09-03 |
| US20090325240A1 (en) | 2009-12-31 |
| US10676751B2 (en) | 2020-06-09 |
| IN2010MU01835A (pt) | 2011-01-21 |
| WO2009108941A2 (en) | 2009-09-03 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| EP2260105B1 (en) | Production and use of plant degrading materials | |
| US8673618B2 (en) | Construction of highly efficient cellulase compositions for enzymatic hydrolysis of cellulose | |
| Verma et al. | Chloroplast‐derived enzyme cocktails hydrolyse lignocellulosic biomass and release fermentable sugars | |
| US7569745B2 (en) | Transgenic plants containing ligninase and cellulase which degrade lignin and cellulose to fermentable sugars | |
| Agrawal et al. | Expression of Trichoderma reesei β-mannanase in tobacco chloroplasts and its utilization in lignocellulosic woody biomass hydrolysis | |
| ES2610923T3 (es) | Pretratamiento consolidado e hidrólisis de biomasa vegetal que expresa enzimas de degradación de pared celular | |
| US20130280764A1 (en) | Method of improving the activity of cellulase enzyme mixtures in the saccharification (ligno)cellulosic material | |
| Miao et al. | Two degradation strategies for overcoming the recalcitrance of natural lignocellulosic xylan by polysaccharides‐binding GH 10 and GH 11 xylanases of filamentous fungi | |
| US10266814B2 (en) | Systems and methods for production and use of fungal glycosyl hydrolases | |
| Longoni et al. | Production by Tobacco Transplastomic Plants of Recombinant Fungal and Bacterial Cell‐Wall Degrading Enzymes to Be Used for Cellulosic Biomass Saccharification | |
| Espinoza-Sánchez et al. | Production and characterization of fungal β-glucosidase and bacterial cellulases by tobacco chloroplast transformation | |
| Farran et al. | Increased bioethanol production from commercial tobacco cultivars overexpressing thioredoxin f grown under field conditions | |
| US10689633B2 (en) | Expression of β-mannanase in chloroplasts and its utilization in lignocellulosic woody biomass hydrolysis | |
| WO2012078741A2 (en) | Novel fungal esterases | |
| Kim et al. | In planta production and characterization of a hyperthermostable GH10 xylanase in transgenic sugarcane | |
| Vasconcelos Pereira | Xylan degradation in filamentous fungi and bacteria | |
| Klinger | Co-expression of cellulolytic enzymes in plant cells | |
| Longoni et al. | Research Article Production by Tobacco Transplastomic Plants of Recombinant Fungal and Bacterial Cell-Wall Degrading Enzymes to Be Used for Cellulosic Biomass Saccharification | |
| Klose | Recombinant cellulase production in plants | |
| Anthony | Evaluation of Agrobacteria-mediated Transient Expression of Cell Wall Degrading Enzymes as a Biological Pretreatment Process for Cellulosic Biofuel Production |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| B07A | Technical examination (opinion): publication of technical examination (opinion) | ||
| B07A | Technical examination (opinion): publication of technical examination (opinion) | ||
| B09A | Decision: intention to grant | ||
| B16A | Patent or certificate of addition of invention granted |
Free format text: PRAZO DE VALIDADE: 10 (DEZ) ANOS CONTADOS A PARTIR DE 09/07/2019, OBSERVADAS AS CONDICOES LEGAIS. (CO) 10 (DEZ) ANOS CONTADOS A PARTIR DE 09/07/2019, OBSERVADAS AS CONDICOES LEGAIS |