JP2000503630A6 - 微生物感染症の治療用治療剤及び診断剤 - Google Patents
微生物感染症の治療用治療剤及び診断剤 Download PDFInfo
- Publication number
- JP2000503630A6 JP2000503630A6 JP1997519932A JP51993297A JP2000503630A6 JP 2000503630 A6 JP2000503630 A6 JP 2000503630A6 JP 1997519932 A JP1997519932 A JP 1997519932A JP 51993297 A JP51993297 A JP 51993297A JP 2000503630 A6 JP2000503630 A6 JP 2000503630A6
- Authority
- JP
- Japan
- Prior art keywords
- vaccine
- cell
- cells
- molecule
- adhesion
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Ceased
Links
Images

Abstract
病原体感染の処置のための治療ぺプチド、ワクチン及び診断剤。
Description
技術分野
本発明は、微生物感染症を治療するための治療用ペプチド類及び炭水化物類、ワクチン類及ひ診断剤に関し、また接着阻止技術を特徴とする。
背景
感染症において、病原体は、体内で移動する白血球に類似の仕方で一方の位置から他方の位置に通行又は移行する。白血球と微生物との通行の相同、最も顕著には、分子のアドレス認識、シグナル伝達、及び内皮及び上皮を通過することは、多くの微生物の接着及び信号系が宿主タンパク質及び炭水化物部分の機能的及び分子的擬態の進化産物であることを意味している。細胞生物学及び微生物病原論のこの近似現象は、哺乳動物細胞の通行の各系に対し、ネットワークと親密に懇意な病原体が存在することを予測している。
宿主を感染させる病原体の能力は、もはや単に細胞死滅させる及び/又は宿主の免疫機序を圧倒する侵入又は毒素生産特性によって単に定義すべきではない。それよりも、最近の研究(1、2、3、27、20、44、52)は、微生物の病原性は、病原体の成長及び増殖に好ましい細胞及び組織環境を見出す手段として宿主の細胞伝達ネットワークを利己的に利用するそれらの能力によってより正確に定義することができることを示唆している。したがって、病原体は、宿主の複雑な化学及び細胞環境を利己的に利用しながら宿主に対する損傷をできるだけ少なくする。機能的な言葉で、組織指向性の基礎となる病原体の選り抜きの組織環境への移動は、特定の分子アドレスを持っている宿主細胞又は細胞外マトリックスを病原体が認識した結果と見ることができる。他の微生物接着の因子が、機能して宿主細胞に合図して、細胞又は周囲の支質への病原体の侵入又は通行を調和する。他の宿主−寄生体相互作用において、病原体は、病原体の成長及び増殖を援護して宿主の代謝機構を先取又は向け直す細胞内信号を展開させる。これらの目覚ましい行為は、宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞の接着分子を包含する細胞−細胞伝達ネットワークを病原体が使用することによって達成されると思われる。
米国特許出願番号第08/247,972号(PCT/US95/06832に関連)及ひ第08/483,558号は、リポソーム担体中の単離ホスホマンノタンパク質(phosphomannoprotein)細胞壁複合体である、カンジダ・アルビカンス(Candida albicans)の接着分子を含有するカンジダ症の治療用ワクチンを開示している。
この従来技術は、病原体及び感染因子が、宿主細胞自体の機構(認識及び信号系)を使用して、宿主細胞を模倣し、また微生物が宿主内を通行しかつ比較的容易に細胞及び組織に入ることを可能とすることを認識していなかった。本発明者等は、病原体が宿主細胞万能抗原(付着又は接着分子)を使用して付着及び増殖することを見出した。本発明は、従来技術における困難に打ち勝って、病原性感染症の治療用の万能型ワクチンを開発する。
発明の開示
本発明の目的は、接着タンパク質、脂質分子又は炭水化物分子等の標的宿主細胞分子のアドレスを模倣する微生物付着分子から成るワクチンを提供することにある。
本発明は、宿主細胞上の分子アドレスに結合することができる1種又はそれ以上の付着分子又はその断片から成り、その結合によって、1つ又はそれ以上の信号伝達路を誘発し、かつ選択された病原体及び/又はその毒素が宿主組織を通行することを可能とすることができる予防及び治療ワクチンを提供する。
本発明の他の目的は、白血球、内皮細胞及び上皮細胞から成る群から選択される細胞の宿主細胞接着タンパク質又は炭水化物分子を模倣する微生物付着分子から成るワクチンを提供することにある。本発明は、また微生物付着分子から成るワクチンも規定する。別の実施態様において、本発明は、宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される細胞の宿主細胞(接着)タンパク質又は炭水化物分子を模倣する微生物付着分子に特異的なモノクローン抗体から成る診断アッセイを提供する。 有利なことに、本発明は、病原体の接着分子を模倣し、かつ宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される細胞のレセプター分子と相互作用する分子から成る治療用ペプチドを提供する。治療用ペプチド分子は、宿主接着分子のレセプター(リガンド)と特異的に反応してもよい。逆に言えば、本発明は、宿主細胞の接着分子を模倣し、かつ病原体の接着分子と相互作用する(を阻害する)分子から成る治療用ペプチド又は炭水化物を提供する。
本発明は、病原体に対し免疫を発現するためのワクチンを得る方法であって、
(a) 宿主細胞に発現した領域を模倣する病原体の付着分子(PAM)を単離し;
(b) 前記単離した付着分子の少なくとも1つの領域に対するモノクローン抗体(mAbs)を発現し;
(c) 前記mAbsによって結合されたエピトープの精製を行い;
(d) 病原体の付着分子のトポロジーを反映するペプチドドメインから成るワクチンを得るの各工程から成ることを特徴とする方法を提供する。
本発明の上記及び他の目的は、本発明の好ましい実施態様だけを本発明を実施する最良の形態を単に例示するものとして示し、かつ説明する以下の詳細な説明及び図面から、当業者に容易に明らかになるであろう。容易に認識されるように、本発明は、本発明の精神及び範囲から逸脱することなく当業界の技術の範囲で改変することができる。
図面の簡単な説明
図1は、宿主/接着系の概略図を示す。1(a)は、付着分子を有する好中球宿主細胞を示し;1(b)は、付着分子を有するリンパ球宿主細胞を示し;1(c)は、付着分子を有する単核球宿主細胞を示し;1(d)は、付着分子を有する内皮宿主細胞を示す。
図2は、原形試験管内(in vitro)血管ずれ流動系の概略図を示す。生体内(in vivo)鏡検を用いる生体内ずれモデルも本発明によって開発され、無処理動物の細静脈に見られる生理学的剪断力下での細胞相互作用を検討した。
発明の説明
本発明は、微生物感染症を治療するための治療用ペプチド類及び炭水化物類、ワクチン類及び診断剤に関する。一般に、本発明のワクチンは、微生物付着分子から成る。より具体的に、本発明のワクチン類は、標的宿主細胞接着タンパク質又は炭水化物分子を模倣する微生物付着分子又はその断片から成る。
好ましい実施態様において、宿主細胞接着タンパク質又は炭水化物分子を模倣する微生物付着分子は、白血球、内皮細胞及ひ上皮細胞から成る群から選択される宿主細胞を模倣する。
付着分子は、セレクチンに実質的かつ機能的に類似した分子のようなセレクチンに似ていてもよい。好ましい実施態様において、セレクチン分子は、E、L及びPセレクチンに類似したものから選択される。
本発明のワクチンの別の実施態様において、付着分子は、インテグリン、好ましくはインテグリン類のVLA、Leucam及び細胞接着ファミリーに似ている。さらに、インテグリン分子に実質的かつ機能的に類似の分子を使用してもよく、VLAI−6、MAC−1、LFAI−3、CD41a、CD49及びCD51インテグリン類から選択されるインテグリン分子がより好ましい。
さらに別の実施態様において、付着分子は、免疫グロブリンスーパーファミリーの一員、好ましくは免疫グロブリンスーパーファミリーのICAMI−3、VCAM、NCAM及びPECAMに似ている。免疫グロブリンスーパーファミリー分子に実質的かつ機能的に類似の分子も、本発明を実施する際に使用することかできる。
さらに別の実施態様に関し、付着分子は、サイトカイン又はケモカインファミリーの一員に似ている。
あるいはまた、本発明のワクチンによれば、付着レセプター分子は、ムチン分子あるいは原核又は真核的接着タンパク質に似ていてもよい。
本発明のワクチンにおいて、病原体によって模倣される宿主細胞接着タンパク質又は炭水化物分子は、白血球、内皮細胞、上皮細胞及び神経系の細胞から成る群から選択される細胞のものである。好ましい実施態様において、内皮細胞は、ICAM−1及びVCAM−1正腸内皮細胞、MAdCAM−1正腸内皮細胞及びPNAd−1正抹消リンパ節内皮細胞等のサイトカイン活性内皮細胞から選択される。標的宿主細胞は、肺胞マクロファージを含む鼻咽頭及び肺胞の細胞から成る群から選択される呼吸器路細胞でありうる。
ワクチンに微生物付着分子を供給する微生物は、百日咳菌(Bordetella pertussis)、中央アフリカ産げっ歯類マラリア病原虫(Plasmodium berghei)、熱帯熱マラリア病原虫(Plasmodium falciparum)、カンジダアルビカンス(Candida albicans)、赤痢菌種(Shigella sp.)、赤痢アメーバ(Entamoeba histolytica)、コレラ菌(Vibrio cholerae)、サルモネラ種(Salmonella sp.)及び大腸菌(E .coli)0157:H7を含む微生物から選択することかできる。あるいはまた、微生物は、マイコバクテリア、レジュネラ(Legionella)、葡萄球菌、連鎖球菌、ヒストプラスマ及び肺炎球菌からも選択することができる。微生物は、偽結核エルジニア菌(Yersinia pseudotuberculosis)又はエルジニアエンテロコリチカ(Yersinia enterocolitica)でありうる。
微生物が百日咳菌である場合、付着分子は、百日咳毒素及び糸状血球凝集素(FHA)又は機能的に同等の分子であるのが好ましい。百日咳宿主細胞認識分子は、タンパク質サブユニットS2及びS3によってコードされる。微生物が、ヘリコバクターピロリ(Helicobacter pylori)である場合、付着分子は、フコース化された血液型O型抗原で相互作用することによって胃上皮細胞に接着するのが好ましい。
あるいはまた、微生物は、腟トリコモナス(Trichomonas vaginalis)、三鞭毛トリコモナス(Tritrichomonas foetus)、クリプトスポリジウム(Crytosporidium)、ジアルジア(Giardia)及びエントアメーバ(Entamoeba)から選択することもできる。付着分子は、リーシュマニア(Leishmania)のgp63でありうる。
かくして、本発明のワクチンは、とりわけ、ヒストプラスマ症、肺ブラストミセス症、ノカルジア症、クリプトコックス症、気管支肺カンジダ症、肺アスペルギルス症、結核症、感染症及び在郷軍人病(Legionnaires disease)から選択される微生物感染症の治療用である。
本発明のワクチンにおいて、接着分子は、炎症内皮上のリガンドを認識するLFA−1、Mac−1及びP150.954から成る群から選択されるCD18接着を模倣するのか好ましい。接着は、プラスミド遺伝子によって発現された、又はコレラ菌、淋菌(Neisseria gonorrhoeae)、髄膜炎菌(Neisseria menignitidis)、緑膿菌(Pseudomonas aerginosa)及び大腸菌(Escherichia coli)から成る群から選択される菌株からの束形成ピリ繊毛に関連した19kDaのEAF繊毛束形成ピリ繊毛接着である。あるいはまた、腸内微生物の接着は、上皮細胞形質膜に接着する外膜タンパク質染色体コード94kDaインチミンでありうる。本発明の他の実施態様において、接着レセプターは、好ましくはN−アセチルノイラミン酸残基の鎖状重合体を有するポリシアル酸である。本発明のワクチンのポリシアル酸は、髄膜炎菌のB群多糖類及び大腸菌のK1多糖類から選択することかできる。
本明細書で使用する用語粘着(adhesin)分子とは、微生物又は病原体付着分子だけを言い、また用語接着(adhesion)分子とは、宿主及び病原体付着分子の両方を言う。
診断アッセイ
本発明の診断アッセイは、宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される細胞の宿主細胞(接着)タンパク質又は炭水化物分子を模倣する微生物付着分子に特異的なモノクローン抗体から成る。
モノクローン抗体は、興味のある病原体に接着する。モノクローン抗体は、そっくりそのまま参照することによって本明細書に組み入れられるサンブルーク(Sambrook)及びマニアチス(Maniatis)等、Molecular Cloning: A Laboratory Manual(1989)、コールド・スプリング・ハーバー出版に記載されている手順に従って、興味のある接着又は付着分子に対して作成することかできる。
呼吸している微生物の検知、同定及び計数のための検定は、
a) 微生物試料を採集装置に通して細胞を捕獲し;
b) 採集装置に呼吸している細胞の検出に特異的な蛍光色素染料を加え、そして染料を保温させる;
c) 採集した細胞を微生物試料中に存在する興味のある微生物と反応する反応性蛍光抗体で処理し;
d) 前記採集装置を、適切な光学系を使用して蛍光色素染料及び蛍光抗体を励起して蛍光を発する蛍光顕微鏡法によって調べるために据えつけ;及び
e) 前記呼吸している標的微生物細胞の量の尺度として蛍光を定量するの各工程から成る。呼吸している微生物の検出に特異的な蛍光色素染料は、呼吸している微生物によって吸収されて、その微生物のチトクローム系によって不溶性ホルマザン結晶に転化されるのが好ましい。呼吸している微生物の検出に特異的な蛍光色素染料は、テトラゾリウム化合物であるのがより好ましい。テトラゾリウム化合物は、5−シアノ−2,3−ジトリルテトラゾリウムクロライド(CTC)であるのが最も好ましい。
別の実施態様において、本発明は、
a) 標的バクテリアに特異的に結合する1種又はそれ以上の抗体を含む免疫磁気(immunomagnetic)ビーズを試験試料液と混合し;
b) 前記試料液を1時間までの間ビーズと相互に作用させ;
c) この試料を、標的バクテリアが付着した磁気ビーズを試料液から分離させる磁気分離器中に入れ;
d) 試料液から液を吸引して、バクテリアが付着したビーズを残し;
e) ゆるく結合したバクテリア及び他の粒子を試料液から除去する溶液でビーズを洗浄し;
f) バクテリアか付着したビーズを、呼吸しているバクテリアの検出に特異的な蛍光色素染料と混合し;
g) ビーズ上のバクテリアを蛍光染色又は特異的な蛍光接合抗体で処理し
h) 前記試料を、適切な光学フィルター系を使用して蛍光色素染料及び蛍光色素標識抗体を励起するエピ蛍光顕微鏡法によって調べるために据えつけ;及び
i) 前記呼吸している標的バクテリアを蛍光させて定量するの各工程から成る呼吸している標的バクテリアの検知、同定及び計数のための方法を規定している。
この検定は、そのままそっくり参照することによって本明細書に組み入れられる、1994年5月18日に出願した米国特許出願番号第08/245,262号又はPCT/US95/05971の開示に従って免疫磁気ビーズを用いて実施することができる。さらに、本出願に対応する暫定米国特許出願番号第60/007,477号をそのままそっくり参照することによって組み入れる。
治療用ペプチド
本発明は、病原体の接着分子を模倣し、かつ宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される宿主細胞のレセプター分子と相互作用する分子から成る治療用ペプチドも包含する。
好ましい実施態様において、治療用ペプチド分子は、宿主接着分子のセレクチンファミリーのレセプター(リガンド)と特異的に反応する。治療用ペプチド分子は、宿主接着分子の免疫グロブリンスーパーファミリーのレセプターと反応するのか好ましい。あるいはまた、ペプチド分子は、宿主接着分子のインテグリンファミリーのレセプターと反応し、又は宿主細胞接着分子を模倣し、かつ病原体の接着分子と相互作用する。
あるいはまた、ペプチドは、宿主接着分子の細胞質遺伝子又はケモカインファミリーのレセプターと反応し、又は宿主接着分子を模倣し、かつ病原体の接着分子と相互作用する。
本発明者等は、脊椎動物の自然に産出する内因性ペプチド抗生物質が、ウイルス、バクテリア、真菌及び寄生虫性の感染症に対する効果的な抑止剤として作用することを見出した。遺伝子コードペプチド抗生物質は、哺乳動物、鳥類、両性類、昆虫及び植物における宿主防御の偏在する成分である。それらの新規合成(de novo synthesis)は貯蔵部位からの放出を急速に誘発して、それらを微生物侵入に対する抵抗の初期に特に重要にすることかてきる。動物の内因性抗生物質ペプチドは、一般に単一遺伝子の産物であり、プレプロタンパク質として合成される。多工程プロセッシングによって、微生物膜透過化を誘発することによって又は微生物表面への接着によって作用することができる成熟ペプチド又はペプチド群を得る。接着ペプチドは、感染微生物の表面に現れた炭水化物又は脂質に結合するレクチンとして作用し、よって微生物を免疫検出及びクリアランスにより受け易くする。これらの結合ペプチドは、感染に至る微生物の宿主接着を阻止する作用も行う。
抗微生物ペプチドのいくつかのファミリーが、ジスルフィド結合、アミノ酸組成、構造的立体配座及び活性スペクトルの存在に関し異なっていると確認された。これらのペプチドは、動物及び植物において著しく豊富で、かつ広く分布している。治療用化合物としてより高度の真核生物の抗生物質ペプチドの役割が、自然免疫における中心的テーマである。C型レクチン類又は炭水化物結合レクチン類はが、セレクチン類並びにMicrobial Lectins and Agglutinins、1996、ニューヨーク、ジョン・ウイリー・アンド・サンズに挙げられている微生物付着分子の宿主を特徴付けている。この引例は、レクチンを使用して宿主標的細胞上の炭水化物リガンドに結合する約60種の微生物を同定している。宿主の炎症細胞上のもの同様、微生物レクチン類は、細胞−細胞相互作用、例えは、バクテリア−内皮又は貧食細胞相互作用における認識の分子として役立つ。さらに、寄生虫の侵入、その細胞内成長及び細胞の最終的な死に対して宿主細胞を生成するする信号伝達に関与する。レクチンは、単体及び複合体の両方の、及び溶液中で自由であろうが、細胞表面にあろうが、可逆的かつ非共有結合的に単糖又はオリゴ糖と結合する。これらの細胞表面の糖類は、レクチンレセプター又はリカンドと呼ばれ、レクチンの特異性を同定する。レクチン類は、バクテリア繊毛等の特異の細胞小器官に関する細胞の表面にしばしば現れ、又はバクテリアによって作れあげられた外毒素の構造の一部である。
自然に産出する又は工作された、宿主−寄生虫接着関連信号伝達及び接着を標的とする抗接着特性を有するmAb類又ペプチド類が、宿主組織に結合する微生物を必要とする宿主感染症用の診断剤、治療剤及びワクチンを製造するために有効である。
接着によって定義される病原性
血管系を通行する多くの病原体は、種々の組織をシードする手段として剪断下に作用する接着経路を用いている。本発明者等は、この概念は、普遍的に適用でき、また任意の病原体によって異なる解剖学系(呼吸器、消化器管、尿路等)に独特の宿主接着経路の使用を示すと信じる。したがって、多くのバクテリア、ウイルス、真菌及び寄生虫微生物のビルレンスを定義する新しい手法を、宿主の伝達ネットワークを浸透する原核及び真核的接合タンパク質の検出及び特性表示に向けることができる。異なる宿主−寄生虫の関係に関するいくつかの研究によって、病原体が感染の途中で宿主の細胞−細胞接着系をどのように使用するかを明らかにする。ある種の顕著な研究の結果を示して、微生物を宿主細胞−細胞ネットワークに浸透させ、かつ感染の行路を指図して展開した機能的擬態のタイプを例証している。
多くの病原体は、血管系に侵入し、かつそれによって運ばれることによって侵入門戸から離れている組織及び器官へ散在又は通行する。いくつかの場合に、病原性バクテリア、真菌及び原生動物が、それらの病理発生中に、セレクチン類及びインテグリン類を含む宿主の接着系を巧妙に操ることが示された。
病原体による宿主細胞−細胞伝達ネットワークの倒錯の分子的根拠
タンパク質−炭水化物相互作用が、無数の生物学的出来事を制御していることが明らかであるけれど、タンパク質−炭水化物結合の低い結合定数が、生物学的伝達における炭水化物リガンドの正確な役割について疑問を起した。しかしながら、セント・ヒライア等(21)によって提案された微生物毒素−宿主細胞相互作用のモデルは、宿主によって用いられたものに対する微生物接着系に見られるタンパク質−炭水化物相互作用の類似性に注意を向け、また後者の相互作用が、レセプター/リガンド対の堅い結合ではなく特異性に関連することを示している。
堅い結合は、タンパク質−タンパク質又はタンパク質−脂質相互作用によって促進されると思われる。この原理は、認識が、タンパク質(セレクチン)−炭水化物(シアリルLe)結合によって伝達されるが、堅い結合及び平坦化が、タンパク質−タンパク質(インテグリン/リガンド)又はタンパク質−脂質結合の結果である好中球漸増に対して実証された。同様にセント・ヒライア等は、VTECホロ毒素のB−サブユニット(最小の公知レクチン類の1種)の接着が、ボツリニス、百日咳及びジフテリア毒素の作用の形態(22)の回顧でもあるタンパク質−炭水化物(毒素を標的とするために)及びタンパク質−脂質(毒素の再防虫への侵入のために)の両相互作用を援用していることを示した。この動機の普遍性には、多くのタンパク質−炭水化物−脂質伝達生物学的認識系に関する構造的かつ精力的研究を必要とする。
病原体又は毒素による宿主の標的細胞の認識及びそれに対する堅い結合は、真核細胞のアクチンネットワークの変更を生じる信号経路の活性化の前兆である(23)。一般に、これらの二次信号伝達は、しばしば細胞の死という結果となる細胞質ゾルの遊離カルシウムの増大、アクチン細胞骨格の急速な再配列又は分裂、及びリソソーム補充及び集落化を含む破壊的結果を誘発する。多くの病原性バクテリア、大部分はグラム陰性微生物は、宿主細胞に結合することによって誘発される特殊(III型)分泌系によって作られるタンパク質をコードする遺伝子を獲得し、かつ明らかに容易に共有している(24)。これらの新規のビルレンスタンパク質は、分泌されたタンパク質を正常には膜透過させる信号配列の欠如によって識別されるが、細胞質ゾル中の特異タンパク質の付着構造を含んでいると推定される。これらは、病原体と標的細胞との特異タンパク質−炭水化物相互作用、その後の細胞内の信号伝達のために必要な構造的かつ精力的な変化を促進するタンパク質−タンパク質の堅い結合の結果として侵入すると思われる。
微生物病原体による宿主接着系の分子的及び機能的擬態例
異なる宿主−寄生虫の関係に関するいくつかの研究によって、病原体が感染の途中で宿主の細胞−細胞接着系をどのように使用するかが判明し始めた。ある種の顕著な研究の結果が、病原体を宿主細胞−細胞ネットワークに浸透させ、かつ感染の行路を指図して展開した機能的擬態のタイプを例証している。宿主及び微生物接着分子が、各系において強調されている。
白血球/内皮細胞伝達ネットワーク
血管内皮細胞への接着には、白血球が血液から組織に出ることが必要である。これらの相互作用は、血液中の白血球と内皮細胞の両方によって発現される接着タンパク質によって制御される。本発明者等は、セレクチン類と呼ばれる接着分子の最近説明されたファミリーにおけるいくつかの接着タンパク質の機能を特性表示した(4、5、6、7)。セレクチン類は、それらのレクチン様構造が、標的細胞上の炭水化物の認識によって選択的な接着相互作用を伝達するので、そのように命名される(8)。1つの白血球セレクチンと2つの血管セレクチン(E−及びP−セレクチン)が定義された。内皮細胞以外に、血小板もP−セレクチンを発現する。L−セレクチンは、白血球によって構成的に発現されるか、免疫サイトカイン、ヒスタミン又は外傷性発作による内皮細胞の活性化が、E−及びP−セレクチンを誘発するのに必要である。セレクチン類以外に、サイトカイン−活性内皮細胞上のVCAM−1(9)、腸の高内皮性細静脈上のMADCAM−1、抹消リンパ節における高内皮性細静脈上のPNAd−1(10)、高炭水化物含有ムチン様分子(11、12)、及びある種のインテグリン(VLA4及びLPAM−1)(13、14)等の他の接着タンパク質も細胞−細胞相互作用を媒介する。インテグリン類は、内皮又は上皮細胞を誘発させることによって白血球又は微生物の遊出の準備において堅い結合をゆるめる働きをする重要な接着タンパク質である。
大抵の場合、白血球と内皮細胞との接着相互作用は、内皮の単層に沿っての白血球の回転によって代表される。これらの回転相互作用は、血管系を通って移動する白血球の速度の>1000倍の低下を生じさせることができる。白血球/内皮細胞相互作用の分析によって、特定のクラスの接着タンパク質が血管系に特徴的に見られる剪断下での結合を優先的に媒介することが実証されている(15、16、17、18、19)。例えば、白血球と内皮細胞との多くの十分に特徴付けられた静的な接着相互作用[例えば、ベータ−2インテグリン類(LFA−1、MAC−1)によって媒介されるもの]は、血流を反映するように設計された高剪断条件下の試験管内検定においては起こらないことかわかった(17、19)。これと異なり、剪断下に優先的に機能する接着分子が確認された。表1は、浸潤に関連した白血球−内皮細胞接着タンパク質の定義の一覧表であり、それらが剪断又は静的条件のいずれで最もよく機能するかを示している。
表1
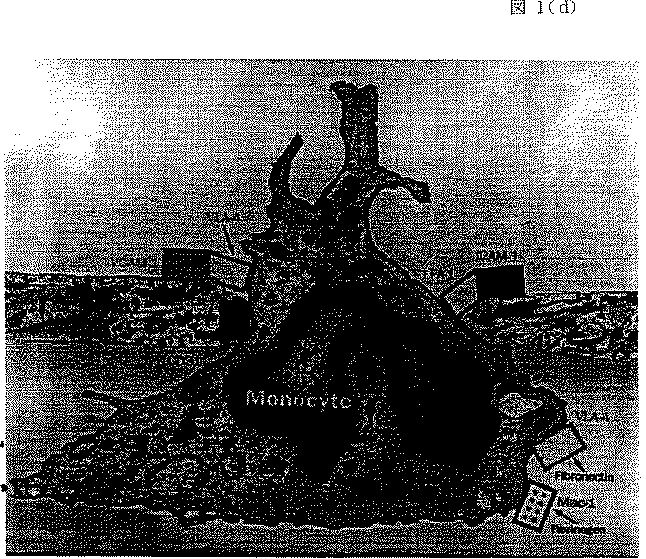 本発明者等は、血管内皮に沿っての白血球の回転か、他の接着相互作用を生じさせて、白血球を血管内皮に堅く結合させると推断する。次に、血管内層を通る移行又は通行が起こる。したがって、3工程が、血管壁に沿う白血球のうまくいく進行に関連する。
1) セレクチン類に関係する剪断依存付着及び回転、
2) 活性化依存接着強化(回転の減速)、その後の堅い接着、
3) 内皮上の誘導性インテグリンによって制御される細胞の内皮を通過する移行。
これらの3工程は全て、創傷又は感染部位への炎症白血球の効果的な補充、又はリンパ組織のシーディングに必要である。
免疫グロブリンスーパーファミリー分子、ICAMI−3、VCAM、NCAM及びPECAMの微生物模倣物の単離は、ここに説明するようにして成される。浮遊IGスーパーファミリー模倣物の公知のリガンド、例えばインテグリントとの相互作用は、微生物模倣物の特徴付けの一部である。
そのうちのいくつかは初期の応答で説明されているように糖タンパク質である原核及び真核の両接着タンパク質の多くの例がある。セレクチン類及び微生物レクチン類を含む炭水化物結合レクチン類の全てが、主として現存している糖タンパク質であり、色々な程度に炭水化物で装飾されている。
真核接着タンパク質は、セレクチン類、インテグリン類、及び免疫グロブリンスーパーファミリー及び細胞−細胞信号伝達及び認識を促進する一連の接着分子、例えば、T細胞上のCD4及びCD8、GTP結合タンパク質(RhoA)、サイトカイン類及ひ成長因子(IL−n、TGF−β1及び肝細胞成長因子)を含んでいる。5を越えるケモカインレセプターが、白血球中に確認され、白血球の通行における大きな役割を演じているように思われる。
今や、宿主寄生虫相互作用における大きな努力が、宿主白血球、内皮細胞、上皮細胞及び神経系細胞等の宿主細胞のアクチンネットワークの変化を促進する接着微生物細胞性、分泌化合物によって開始される信号伝達に向けられている。
血液中を通行する白血球は、a)リンパ球、b)好中球、c)単核球及びd)血小板と様々に分類される。血液か持つ細胞と相互作用する、又はそれから得られる他の細胞には、抗原提示細胞(M細胞、枝状細胞、マクロファージ)及び薬理学的に活性な化合物を作成又は分泌する細胞(肥満細胞、好酸球)がある。リンパ球群には、それらが演じる異なる機能的役割によって定義される抗原反応性T細胞類(細胞障害性、ヘルパー細胞、抑制性、等)のサブセット及びそれらが発現する表面抗原類又はレセプター類の組合せがある。T細胞の2種の異なるサブセットは、宿主の免疫応答を細胞性免疫応答(Th1)又は体液性免疫応答(Th2)に向ける手助けとなる。他のリンパ球群、B細胞類は、IgMの初期単量体及びもっと後のIgD分子であり、血漿細胞に成熟した後に、免疫グロブリンを生産、分泌する膜結合免疫グロブリン類の存在によって特徴付けられる。
マクロファージは、血液が持つ単核球から発現し、また抗体の多くの細胞表面レセプター、補体、及び内皮及び表皮を貫通する移動を促進する種々の細胞−細胞相互作用を携えている。枝状細胞も、大きな運動性細胞であり、マクロファージ同様、抗原のリンパ球に対するプロセッシング/提示に関与する。
免疫系の細胞及び炎症細胞応答に関与するものの多くは、血液及びリンパ中で非接着細胞として循環し、また付着細胞として組織を通って移行する。異抗原又は炎症性刺激の存在下に、これらは、リンパ系器官中に集まり、内皮及び基底膜障壁を横切って感染部位に凝集し、そして異抗原を持つ細胞に接着することができねばならない。白血球の付着及び非付着状態間には、免疫監視及び反応の二機能に重要な、急激な転移かある。接着レセプターの3つの主なるファミリーは、白血球の局在下及び移行又はホーミングを宿主の異なる組織に指図する。免疫グロブリンスーパーファミリーは、T及びB細胞の抗原特異レセプター中に見られ、インテグリンファミリーは、内皮及び上皮を横断する白血球の接着及び移行の動的制御に重要であり、またセレクチン類は、白血球の血管内皮との相互作用に卓越している。ある場合に、これらの接着分子の対レセプター又はアドレッシンが、白血球をパイエル板、皮膚又は腎臓内皮に移行させる組織又は細胞特異性であることが判明した。血小板は、それらの白血球及び内皮細胞との相互作用を介して血管生理学の変化、及び感染及び炎症関連した薬理学的に活性の薬剤の作成に密に関係する。P−セレクチンは、血小板のα顆粒及び内皮細胞のヴァイベル−パラーデ体に貯蔵され、トロンビン等の凝固カスケードの生成物による刺激後にこれらの細胞の表面に急激に流通され、好中球及び単核球の接着を媒介する。これらの因子は、再灌流及び外傷性創傷並びに組織及び器官の機能を阻害する他の血管での出来事に作用する。
上皮細胞は、哺乳動物の消化器官、生殖泌尿器官、上部呼吸器官及び種々の器官の管腔表面を被覆する。上皮細胞は、インテグリンファミリーの多くの構成員を発現し、また病原体接着分子類(PAMs)の対レセプターとして機能する異なる糖接合体の宿主を保持している。神経系細胞の例には、星状細胞、神経膠細胞、シュヴァン細胞及びニューロンがある。神経系細胞に見られる優性宿主接着分子は、NCAM及びICAMである。PAMに結合するリガンド対レセプターは、シアル酸に富んだ構造体である。ICAM−1、VCAM−1、MAdCAM−1(パイエル板)及びPNAd−1(抹消リンパ節)を持つ内皮細胞の例。
内皮細胞は、(a)炎症伝達物質による刺激及び(b)組織又は器官環境中のそれらの位置付けに依存する1種又はそれ以上の接着分子を発現しうる。ICAMサブファミリーは、一般に、感染又は組織損傷の間に作られるリポ多糖、γ−インターフェロン、インターロイキン−1及び腫瘍壊死因子(TNF)を含む炎症伝達物質による刺激の結果として内皮細胞上に発現される。VCAMは誘導動態及びICAM類に類似した機能を有するが、ICAM類がLFA−1インテグリンに結合するのに、VLA−4インテグリンとだけ相互作用する。
血液中のリンパ球は、特殊「高」内皮細胞に結合してリンパ節に入る。異なるタイプのリンパ節中の特殊HEV上に選択的に発現した「アドレッシング」と呼ばれる分子は、ホーミングレセプターリカンドとして機能する。したかって、MAdCAM−1を発現する内皮細胞は、パイエル板及びインテスチンに関連したリンパ系の固有層の高内皮細静脈に見られる。PNAd−1を発現する内皮細胞は、抹消リンパ節に見られる。
内皮細胞上に発現したものを模倣する病原体の付着分子の単離は、付着分子のリガンドを発現する標的細胞を用いる試験管内又は生体内接着アッセイ系での本発明者等のその検出及び特定表示から始まる。例えば、病原体によって使用されるMAdCAM−1様分子を検出するために、MAdCAM−1リガンドを発現する標的細胞系、α4β7インテグリンを使用する。インテグリンを発現する線維芽トランスフェクタント類もアッセイに使用することができる。接着分子を検出すれば、その特異性が、微生物の標的細胞への接着を阻止する抗−MAdCAM−1モノクローナル抗体(MECA−367)を用いる処理によって立証される(バルガッツ(Bargatze),R.等、1995、Immunity、3:99−108)。同様に、VCAM様又はICAM様付着分子か、インテグリンα4β1又はLFA−1をそれぞれ発現する標的細胞を用いるアッセイで検出される。
百日咳 − 百日咳菌は、その糸状血球凝集素(FHA)を用いて白血球インテグリン信号伝達複合体と直接相互作用して、血管ネットワークに及びそれから移動する(25)。インテグリン類に結合する分子の記号は、Arg−Gly−Aspトリプレットである。この配列は、しはしは接着ドメインの一部として多くの他の原核タンパク質に見られた。インテグリン類は、大抵の哺乳動物細胞系の隣接細胞を結合する重要な役割を演じているので、ある種の病原体は、内皮及び上皮を横断するためにこの認識系を使用するようになった。この機構によって、百日咳菌は、それ自体の付着及び宿主細胞接着信号伝達経路を吸収することによる全身性播種の潜在能力を高める。FHAは、マウス呼吸系感染における重要な定着因子であることが証明された。感染におけるその役割は、抗−FHAmAbsで阻止することによって首尾よく鈍らせられた(26)。
マラリア − 中央アフリカ産げっ歯類マラリア病原虫及び熱帯熱マラリア原虫に感染した赤血球は、大脳マラリアに関連したしばしば重傷の合併症を招く。これらの合併症は、それら自体及び内皮に機械的に接着することによって脳の血流を妨害する感染赤血球の直接的な結果である。マウスマラリアモデルにおける血管及び白血球接着分子の役割を調べる研究において、LFA−1(インテグリン)接着分子に対するmAbを用いる静脈内処理によって中央アフリカ産げっ歯類マラリア病原虫に感染した赤血球が、脳内皮に結合しかつ血流を妨げることが防止されることが示された(27)。熱帯熱マラリア原虫に感染したヒトの患者からの赤血球を調べる他の研究によって、ヒト脳内皮への付着の手段としてE−セレクチン及びVCAM−1への特異的接着が実証された(28)。
カンジダ症 − カンジダアルビカンスに関する研究によって、それが、血液原の酵母細胞のマウス脾臓辺縁層マクロファージ及び抹消リンパ節(おそらく、インテグリン)に接着する能力の原因であるホスホマンノタンパク質をその表面に発現することが示された(29)。血管の細胞外マトリックス中のフィブロネクチンに結合するカンジダアルビカンスは、血液播種性真菌症の真菌接着を促進する直接的役割を演じると示唆された(30)。
呼吸器官病原体
呼吸器官は、病原体に対して3つの環境:鼻咽頭の線毛を持つ上皮、肺胞及び肺胞マクロファージを与える。線毛の持つ上皮に付着する病原体は、組織指向性に関し炭水化物アドレスを頼りにしている。肺胞に対する肺炎の古典的病原体の局在も、炭水化物認識に基づくものであるが、分子関与体は知られていない。宿主との微生物のアドレス認識及び信号伝達系の機能的相同を明らかにする最も決定的な研究は、肺胞マクロファージに関するものである(26)。マクロファージは、炎症を引き起こされた内皮上のリガンドを認識する接着分子のCD18ファミリー、LFA−1、Mac−1及びgp.150.954を用いることによって肺に侵入する。他の余り頻繁には使用されない経路は、肺炎球菌によって引き起こされるCD−18ではない経路を含み、また重要な伝達物質としての血小板活性化因子を包含する。肺胞マクロファージに侵入し、そこに駐在する病原体は、マクロファージに侵入し、かつ白血球からさもなくば致死の酸化的群発を妨ける手段として接着分子のCD18ファミリーを使用している。レジュネラ、マイコバクテリア、連鎖球菌及びヒストプラズマは、インテグリンそれ自体又はC3bi等の自然架橋リガンドのいずれかの種々のCD11/CD18決定子に結合する(1)。感染過程における微生物接着及び信号伝達の役割に関する最も決定的な研究が、百日咳菌を用いる感染について行われた(35、32)。百日咳菌は、マクロファージに2種の接着リガンド:百日咳毒素(PT)及び上記糸状血球凝集素(FHA)を与える。PTは六量体であり、そのBオリゴマーもC型セレクチン:フコース化ポリラクトサミンに類似の炭水化物嗜好性のレクチンである。PTのレクチンに似た特徴は、百日咳菌の線毛及びマクロファージへの接着を指図する。PTの細胞認識特性が、80%相同であり、またC型セレクチンに見られる残基(15乃至55)の領域と同一である2種のタンパク質サブユニット、S2及びS3に局在された。この配列相同性は、サブユニットが、好中球のセレクチン被覆表面との相互作用を阻害することができる点で共通の機能に及ぶ。
PTの第二の特性は、白血球接着分子のインテグリンファミリーの機能をアップレギュレーションする能力である。PT接着による炭水化物のリゲーションが、CR3に特異のリガンドである第二の接着FHAを付着させ、またマクロファージ中へのバクテリアの取り込み及び生存を誘発させるインテグリンCR3(Mac−1)をアップレギュレーションする。したがって、PT接着は、感染過程において2つの機能:アドレス認識及びマクロファージに信号を伝達して微生物のレセプター部位の増大、を有している。病原体が、肺胞マクロファージ接着系を用いて感染工程を開始し、また多くの場合に宿主接着分子を使用する能力を利己的に利用して、他の組織及び器官に広めることに「なった」と思われる他の疾病には、幡種性ヒストプラスマ症、肺ブラストミセス症、ノカルジア症、クリプトコックス症、気管支肺カンジダ症、肺アスペルギルス症、在郷軍人病及び結核症がある。
胃腸器官病原体
胃腸器官は、病原体に、胃の円柱上皮から十二指腸、空腸及び回腸のブラシ状の縁取りの上皮までを潤す酸性環境、及び結腸の立方上皮を始めとしていくつかの環境を与える。胃腸器官の管腔面は、上皮細胞層中に埋め込まれた高度に特殊化された杯細胞によって主として生産される粘液で覆われている。粘液は、ある領域と次の領域で、さらには腸管の領域内の細胞同士で化学組成が異なる。シアル酸残基に富む糖タンパク質の粘液類は、下にある上皮を微生物活性の有害作用から保護する重要な役割を演じている。
腸の正常な細菌フローラは、GI管の感染の過程を指図する重要な役割を演じている。競合及びそれらの拮抗関係及び遺伝的相互作用を促進する種々の種が存在する大腸の純質量の微生物(1m2、1010/g)は、宿主と非常に複雑な関係を生じる。胃腸器官の病原体は、細菌及び真菌の非常に大量の寄生種を含んでいる。
まとめて腸内桿菌と呼ぶ腸バクテリア病原体は、共通の抗原を共有し、かつ遺伝的に関連する幾つかの属の元に正式に分類される。腸内桿菌の共有する特性の中には、接着分子、外毒素及び内毒素を含むそれらのビルレンスに寄与する因子がある。腸内微生物間の新しい遺伝因子を交換する結果として、新しい菌株が生じ、既にある大量の腸内病原体に加わる。適切な例は、二次ビルレンス因子を保持する最近進化された病原体クローンに属する大腸菌病原体0157:H7、志賀様細胞毒素(ベロトキシン、verotoxin)及びプラスミドコード接着(34)である。
多くの腸内バクテリア感染の組織病理学、付着及び展退(A/E)は、病原体の腸上皮への特異的付着及び内毒素、ある場合には力価の高い外毒素の関与の結果である(35)。大抵の腸内病原体は、試験管内組織培養細胞及び生体内エンテロサイト及びコロノサイトの両方への細菌性結合のA/E形を示す。細胞接着の伝達物質は、細菌染色体上に存在する遺伝子集団(eaeA loci)及び/又はEAFと呼はれるプラスミドコード因子(EPEC付着因子)に依存する複雑な表現型に寄与するように思われる(36、37)。ベロトキシン原性大腸菌(VTEC)、毒素原性大腸菌(ETEC)及び腸管病原性大腸菌(EPEC)、ハフニアアルベイ(Hafnia alvei)及びシトロバクターフロインディ(Citrobacter fruendi)の多くの血清型は、eaeA陽性であり、類似した接着表現型を有している。eaeA−陰性大腸菌(38)及び胃病原体ヘリオバクターピロリ(39)によって生産されたA/E病巣は、下にある細胞骨格要素の検出可能な補充を欠いている。
2つの付着形態かeaeA遺伝子及び/又はプラスミドコード遺伝子座の発現から得られる(40、41、42)。第一又は最初の(局在)付着は、束形成線毛(BFP)と呼ばれる19kDaのEAF繊毛接着によって促進される。BFP接着は、微絨毛の表面への付着及び展退に至る事態の開始を生じる。興味のあることに、大腸菌のBFPのアミノ酸配列は、その全てがIV型フィムブリエファミリーの一員であるコレラ菌、淋菌、髄膜炎菌及び緑膿菌の線毛に類似している。19kDaの接着タンパク質が、上皮細胞上の炭水化物リガンド、又はあまり起こりそうもないが、粘液に関連する特異の炭水化物エピトープと反応することが提案されている。この付着及びその後の微定着に引き続き、細胞内カルシウム濃度の上昇、宿主細胞タンパク質チロシンキナーゼの活性化、液分泌及び重傷ベロトキシン原性大腸菌感染における細胞骨格構造の十分な変化を生じることになる信号の伝達が行われる。インチミンと呼ばれる接着構造を含む染色体コード94kDaの外膜タンパク質(OMP)によって促進される第二の付着は、微生物を上皮細胞形質膜に密に付着させ、上皮の細胞骨格タンパク質に顕著な効果を及ぼし、またある場合に粘膜下組織への侵入に至る細胞信号伝達を増幅するように思われる。大腸菌インチミンのアミノ酸配列は、偽結核エルジニア菌及びエルジニアエンテロコリチカのものに非常に類似している(44)。インバシン類は、高い親和力で、ベータ−1ファミリーインテグリンレセプター類の一員に結合して、細菌の効果的な取り込みを媒介する。したがって病原性大腸菌がOMP接着を用いてベータ−1インテグリンドアを通過し(呼吸器感染におけるベータ2インテグリン類とは非常に異なる)、また上皮細胞の細胞骨格に沿って移動すると信じる理由がある。
ヘリコバクターピロリは、世界の人口の大半に効果的に定着し、現在慢性胃炎及び消化性潰瘍形成の主因と受け入れられている(45)。この細菌は、上皮細胞及び胃壁の粘膜層に親和的である。胃上皮細胞への付着は、血液型Oの表現型に関連したフコース化血液型抗原と相互作用するレクチン様接着によって媒介される(46)。表面上皮の退化は、細胞毒素、ウレアーゼ及びLPS等のプロ炎症生成物を含む細菌生成物質の活性の予想される結果である。
大腸菌、志賀赤痢菌(1型)、ネズミチフス菌(Salmonella typhimurium)及びコレラ菌のある種の血清型は、単一32kDano「A」サブユニット及び5x7.7kDaの「B」サブユニットから成る力価の高い71kDaの多ペプチドサブユニット細胞毒(志賀様又はベロトキシン)を生産する(22)。B−サブユニットは、ホロトキシンの宿主の内皮細胞上の高親和性(Kd=1010M)の細胞表面レセプターへの結合を促進し、その中に入る。内皮細胞レセプターは、糖脂質、ガラクトースδ−1,4−ガラクトース−β−1,4−グルコースセラミド(Gb3)である(47)。A−サブユニットは、リボソームレベルで内皮細胞におけるタンパク質合成を阻害する。
大腸菌及びピロリ菌による感染の伝達物質としての細菌付着は、赤痢菌種、コレラ菌及びサルモレラ種並びに多くの原生動物寄生虫(赤痢アメーバ)及びウイルスに記載されたものより起こりそうである。上皮表面に病原体を位置させる際に、内皮表面を変える又は撤去する他のビルレンス因子(毒素、酵素等)の作用の下地を作る。これらの接着相互作用は、病原体を清浄のフローラの拮抗挙動及び腸の蠕動運動の潮紅作用から単離する働きもすることができる。
中枢神経系
細菌性髄膜炎は、微生物の感染の最初の部位から髄膜の細胞への通行の結果であると思われる。髄膜炎菌が感染した場合、侵入門は、鼻咽頭であり、微生物は、感染の明白な兆候なしに長時間そこに留まる。一方、大腸菌によって引き起こされる髄膜炎は、胃腸器官又はたまに下部呼吸器官及び尿路にその原因がある。
細胞付着は、上皮細胞上の特異の炭水化物レセプターの認識を伴う侵入門での感染を確立する役割をどうも演じているらしい。
フィネ(Finne)の研究(48)は、糖タンパク炭水化物の一部として、ポリシアル酸が、脳における細胞のアドレスの認識に重要な役割を演じているという意見を支持している。ポリシアル酸鎖は、α2−8結合によって結合されたN−アセチルノイラミン酸残基の重合体である。1鎖当たり12又はそれ以上と多くの炭水化物残基が存在する。シアル酸は、糖タンパク質に普通に見られるN−結合トリ−及びテトラアンテナリ型であると思われる核グリカンに結合している。若い哺乳動物の脳は、大人の脳が、あまりシアリル化されておらずまたより短い鎖であるのに比べて、非常にシアリル化されている。種々の研究か、ポリシアル酸の主なる役割が、シアル酸に富んだ嚢を持つ微生物を通行するための特異な分子アドレスが髄膜細胞の接着分子に存在することを示唆する脳における接着活性を調節することにあると示唆している。
髄膜炎菌の嚢型特異多糖は、シアル酸に富んだ酸性糖残渣の重合体である。大抵は、有効な免疫原であるが、髄膜炎菌のB型多糖及び大腸菌のK1多糖は、低力価の低親和性IgMクラスの抗体を刺激する。B及びK1多糖に対する劣った反応は、どうも脳ポリシアル酸と化学的に同等である嚢物質に対する免疫的な反応性のなさの結果であるらしい。いずれにせよ、髄膜炎菌又はK1を持つ大腸菌による脳細胞における接着レセプターの認識は、これらの微生物の組織親和性を説明している。
他の微生物付着系
淋菌は、内皮細胞表面に付着することによって生殖泌尿器官の感染を開始する人の必須の病原体である(40)。この付着は、線毛化株だけか、細胞に付着することかできるので、線毛関連接着によって伝達される。付着に際し、淋菌は、外膜タンパク質によるある形態の信号伝達に従って上皮細胞によって吸収されるようになると思われる(50)。多くの淋菌か、柱状上皮細胞間に侵入し、おそらく上皮細胞連結に関連するインテグリンレセプターを活性化することによって上皮下組織に到達する。
リーシュマニア症は、リーシュマニア(Leishmania)属に属する原生動物の幾つかの種の1つによって引き起こされる一群の病気である。これらの原生動物は全て、フレボトムス(Phlebotomus)属のサシチョウ蠅蝿に噛まれることによって運ばれる。リーシュマニア属の主なる表面糖タンパク質である、gp63、フィブロネクチン様分子は、寄生虫−マクロファージ相互作用に重要な役割を演じている(51)。マクロファージ中の寄生虫のその後の成長及び残存が、病気の間細網内皮系の一部又は全部の大規模な併発に寄与している。
ヘルペスウイルス
全ての公知のウイルスタンパク質のうち、二三のものは、宿主細胞タンパク質に著しい配列相同性を有しているが、ウイルス因子は、付着及び侵入のために宿主細胞上の認識分子に頼っている。しかしながら、RNAレトロウイルス及び2クラスのDNAウイルス、すなわちポックスウイルス及びヘルペスウイルスは、サイトカインの分子擬態を用いて宿主細胞機能を破壊している(20)。ヘルペスウイルスのケモカインレセプター相同体は、信号を宿主白血球の細胞質に伝達する宿主膜タンパク質を模倣し、ヘルペスウイルス複製及び/又は潜伏の確立のためのサイトゾル環境を確保している。
本発明者等がこれらの研究から引き出した大変革の結論は、全てではないが大部分の病原体が、宿主のものを機能的に模倣する接着分子を使用することによって宿主のネットワークに浸潤することを「学んだ」ということである。原核接着分子の機能的及び分子的性質を理解する本発明者等の出願は、新世代の診断試薬、治療用化合物及びワクチンの開発に至った。
本発明者等は、微生物起源及び「試験管内進化」によって同定下両方の機能的に類似しているが、抗原性的には識別できる接着分子に対する免疫化のための高力価の免疫原を検出する新規の試薬を開発する。さらに、特定の群の免疫学的に適格の細胞を、感染的接着が起こるらしい器官及び組織部位(即ち、腸管又は鼻咽頭領域)に補充する新規のアジュバントを開発する。
本発明は、微生物−宿主信号伝達及び接着を廃棄した、診断薬、治療薬及びワクチンを開発するための新規の方法である。白血球と微生物との通行の相同、最も顕著には、分子のアドレス認識、シグナル伝達、及び内皮及び上皮を通過することは、多くの微生物の接着及び信号系が宿主タンパク質及び炭水化物部分の機能的並びに分子的擬態の進化産物であることを意味している。細胞生物学及び微生物病原論のこの近似現象は、哺乳動物細胞の通行の各系に対し、ネットワークと親密に懇意な病原体が存在することを予測している。
幾つかの病原体−宿主細胞接着系の機能及び特徴が、試験管内剪断アッセイ系を用いて本発明者等によって確認された。これらの宿主−寄生虫接着系には、ベロ細胞毒原性(verocytotoxic)大腸菌、胎児三鞭毛トリコモナス、カンジダアルビカンス及びハンタウイルスがあるが、これらに限定されない。(1)接着因子及び標的細胞上のそれらの対レセプターの検出及び特性表示を助成し、かつ(2)適切な標的細胞を用いる試験管内付着の動力学を定義するために微生物接着因子に対するモノクローン抗体を開発した。本発明は、試験管内標的細胞−病原体系の各々の接着相互作用の性質及び機能を定義する。
一実施態様において、本発明は、以下のことを用意する。
1. 接着アッセイに使用するための病原体の凝集物又は懸濁液の調整。
2. 接着アッセイのために標的細胞の初代培養の調整。
3. 剪断下の病原体の標的細胞レセプターとの接着性の評価。
4. 異なるレベルの剪断力下の病原体と標的細胞との接着相互作用の親和性の評価。
5. 抗セレクチン及び抗インテグリンを含む抗接着試薬の標的細胞−病原体相互作用に及ぼす効果の試験。
インテグリン分子に対する機能的な同等物(宿主相同体)の数例がある。1)ICAM−1内皮細胞に結合するライノウイルスの表面上のインテグリン様領域;2)ICAM−1に結合するカンジダアルビカンスの表面;及び3)腸上皮上のN−アシル−ガラクトサミンに結合する赤痢アメーバの表面。
ワクチン製剤を調製して使用するために、インテグリン様付着分子(アドヘシン)をここで述べるように定義、調製する。成功の鍵は、(1)微生物遺伝子によってコードされる、ゆえに哺乳動物に異物(免疫原)である接着分子の接着部位のアミノ酸配列及び(2)凝集形態又はそれを安定化し、生体内での退化から保護する媒体中あるかの免疫装置に対する提示に依存している。
それらの自生の及び機能形態のインテグリン類、VLA、Leucam及びサイトアドヘションは、宿主由来のものであるのでワクチンの製造に使用しない。その代わりに、宿主細胞又は細胞外基質タンパク質上の類似のリガンドと反応する宿主のインテグリン分子の微生物ペプチド相同体を使用する。あるいはまた、それらと共に、ファージ−表示選択によって等「試験管内進化」を経て発展させた分子も使用することができる。本論文において、寄生虫又は病原体は、偶然に、またおそらく遺伝的盗用によって、機能的に類似しているが、宿主レセプター分子(インテグリン、セレクチンあるいは炭水化物、タンパク質又は脂質リガンド構造体)とは抗原的に異なる糖タンパク質、糖脂質又は炭水化物構造体を得た。
病原体及び宿主の両方の接着関連信号伝達及び接着性レセプター及びリガンドの同定によって、白血球、内皮細胞及び上皮細胞から成る群から選択される細胞と相互作用する病原性微生物(又は機能的類似体)のアドヘシン分子又は病原性微生物の接着分子と相互作用する宿主細胞(類)(又は機能的類自体)の接着分子から成るワクチンの開発が規定される。
新世代の生物学的製剤: 接着阻止剤
明確な感染症モデルに伴う接着の効果的な阻止を立証することによって、多くの細菌、ウイルス、真菌及び原生動物感染症用の新規のワクチン類、治療剤及び診断剤を開発する基礎が提供される。この「接着阻止技術」(ABT)は、ヒト及ひ動物両方に使用するための一連の新規の製品及び用途を生じる。宿主への通行が接着によって媒介される事であり、そして接着に基づく試薬から成る又はそれを含む効果的な新規の診断剤、治療剤及びワクチンが開発される病原体の数例には、例えば、サルモネラ、赤痢菌、コレラ菌、エルジニア、ボルデテラ、レジュネラ、カンジダ、ヘリコバクター、ナイセリア、ヒストプラスマ、リーシュマニア種、インフルエンザ、ハンタウイルス、HIVウイルス、大腸菌(VTEC)、トリコモナス、アイメリア(Eimeria)、ネズミマクムシ(Trypanosoma)、EBウイルス(Epstein-Barr virus)、肺炎球菌(Pneumococcus)、連鎖球菌、風疹(Rubella)、ヘルペス、ブドウ球菌、クラミジア(Chlamydia)及びジアルジア(Giardia)がある。
「接着阻止剤」を使用する利益
「接着阻止剤」技術は、新世代のワクチン、治療剤及び診断剤の基礎となり、また以下のような既存の治療及び検出技術に勝る利益を提供する。
ワクチン − 新規の高特異性及び組織標的サブユニットワクチン技術の開発は、侵入注射の必要を排除する経口的又は経鼻的に投与することができるより効果的かつより低コストのワクチン群を提供する。本発明者等は、特異の細胞(例えば免疫)区画の誘導部位への接着性抗原を標的とする微生物(接着性)抗原の限界ペプチドドメインを発現する生ベクター送達系から成るWu等(54)に記載されたもののような組換えワクチンを開発する。得られた免疫応答は、粘膜表面及び全身免疫区画のほぼ全域の両方で効果的であることが示された。
治療剤 − 新世代の治療用化合物の有効性を、接着性ペプチド(56)及び炭水化物(57)を用いて細胞−細胞接着相対作用を阻止することができることを示す研究で実証した。したがって、接着性レセプター又は炭水化物の両ペプチド模倣体を含む抗微生物治療剤は、病原体が、宿主細胞のレセプターリガンドに付着するのを処置又は予防するのに有効である。本発明者等は、抗接着モノクローン抗体を用いて接着性ペプチドドメインのアミノ酸配列を明らかにして、ファージペプチド表示ライブラリーを調べる(58)。このような治療剤は、無毒であり、比較的安く製造及び投与され、また抗生物質治療によくあることだが、病原性種内の突然変異による「抵抗」の発現によって妨害されない治療及び/又は治癒活性を有している。
診断剤 − 新世代の診断剤は、任意の群の病原体(例えば、サルモネラ種、連鎖球菌等)の全てのサブタイプではないが大部分に共通する主なる、共通のビルレンス因子(接着分子)を検出及び同定することができる。また、接着分子は、おそらく大抵の病原体によって血液及び他の体液中に注がれるので、適切な抗体に基づく検定(アッセイ)によって兆候の出る前に十分に検出することができる。本発明に基づく診断アッセイは、「計量棒」技術のように使用し易く、安価であり、そのうちの幾つかは、店頭(OTC)製品として売買することができる。
実施例1
細胞表面のストレプトコッカル抗原(SA I/II)に応答するT−細胞及び抗体は、“T-cell, adhesion, and β-cell epitopes of the cell surface Streptococcus mutans protein antigen I/II”と題されたKelly, C.G., Todryk, S., Kendal, H.L., Munro, G.H.,Lehner, T., Department of Immunology, United Medical School at Guy's Hospital, London, United Kingdom の、Infect. Immun.(United States), Sep. 1995, Vol.63, No. 9, pp. 3649-58において述べられているように、自然に感作したヒトで研究する。
血清抗体の応答は、唾液の受容体への細菌性接合に関与するSAI/IIのN−末端(残基39〜481)と中心(残基816〜1213)領域に支配的に指向する。T−細胞の応答も中心領域に支配的に向けられる。接着性エピトープはもちろん、免疫優勢で小数のT−細胞及びB−細胞が関連する直線状のペプチドも残基816〜1213内にマッピングされる。免疫優勢のT−細胞及びB−細胞のエピトープは残基803〜853内に確認でき、それは接着性エピトープ(残基1005〜1044)から直線配列内で分離される。接着性エピトープは、少数のB−細胞とT−細胞のエピトープ(残基1005〜1054及び1085〜1134)とオーバーラップする。免疫優勢で乱交差するT−細胞のエピトープ(残基985〜1004)は、接着性のエピトープ(残基1005〜1024)に隣接する。接着性エピトープに応答する限られたB−細胞は、口腔内をクローン化するストレプトコッカスミュータンスの系列と一致している。T−細胞の戦略といえる接着性とB−細胞のエピトープのマッピングとは、重要な機能的決定基に応答することに焦点を合わせたサブユニットのワクチンの成分を同定するための一般的なアプローチを表す。
SAI/IIのエピトープは、歯のカリエスに対するサブユニットワクチンの成分を構成する。
実施例2
抗血清は、“Antibodies to peptides corresponding to a conserved sequence of gonococcal pilins block bacterial adhesion.”と題された、Rothbard, J.B. Fernandez, R., Wang, L., Teng, N.N.,Schoolnik, G.K. の、Proc. Natl. Acad. Sci. USA, Feb. 1985,Vol. 82, No. 3, pp. 915-9に記載されたように、同類の菌株及び異型の菌株の両方から得られる無傷の線毛と交差反応する能力について淋菌株(ゴノッコッカルストレイン)MS11のアッセイを行い、それから得られる線毛の定常配列及ひ可変配列に対応する7個の合成ペプチドのそれそれに対して生成する。このペプチドはおおよそ等しいアンチペプチド応答を誘導するが、無傷の線毛と交差反応させた抗血清を生じさせる能力は実質的に異なる。保存された配列の領域に対応するペプチドに対する抗血清については、残基69−84に向かう抗血清が固体−相のアッセイとイムノブロットの両方でテストされた全ての菌株から得られる線毛を結合する点で最も有効である。また抗−69−84は、ヒトの子宮頚部内細胞を結合することかわかっている線毛のトリプシンによって生じたフラグメントを効果的に沈澱させる。この二つのペプチド(121−134及び135−151)に対する血清が、MS11線毛との交差反応を同じようにする菌株−特異性のエピトープを含んでいることは前記に示したが、異型の菌株から得られる線毛を結合する能力については異なる。抗−121−134は菌株−特異性であるが、これに対して抗−135−151は全てのテストした線毛に結合する。それぞれの血清は、ヒトの子宮癌の細胞ラインへの細菌性結合を阻害する能力について検査する。残基41−50及び69−84に対して生じた血清が、異型の淋菌株が結合しないようにうまく阻害する。
これらのぺプチドは、淋病を抑制するための効果的なワクチンの成分である。
本発明にかかる診断薬またはアッセイは、白血球、内皮細胞、上皮細胞、及び他の標的の宿主細胞からなるグループより選択された細胞と相互作用する病的器官の接着性分子に特異的なモノクローナル抗体、即ちぺプチド構築物を含んでいる。
実施例3
肺炎マイコプラスマ(Mycoplasma pneumoiae)のゲノムライブラリーは、“Identification of P1 gene domain containing epitope(s)mediating Mycoplasma pneumoniae cytoadherence.”と題された、Dallo,S.F., Su, C.J., Horton, J.R., Baseman, J.B. Department of Microbiology,University of Texas Health Science Center, San Antonio の、J. Exp. Med. (United States), Feb. 1, 1988, Vol. 167, No. 2,pp. 718-23に記載されたように、発現べクターラムダgt11に剪断したゲノムのDNAをクローニングすることによって構築する。
組換えクローンは、細胞接着を仲介する接着性P1エピトープと反応する抗−肺炎マイコプラスマmAbを用いてスクリーニングする。異なる大きさの挿入物を持った10個のクローンが単離される。これらのクローンは、P1遺伝子のCOOH末端に局在するP1配列を持っている。全てのクローンは、肺炎マイコプラスマで感染した患者の急性期及び回復期の血清と反応する融合タンパク質を産生する。おもしろいことに、一つのクローン、即ちP1−7は、一個のコピーとして肺炎マイコプラスマのゲノムに存在している13個のアミノ酸の領域に入るエピトープを含んでいる。
この細胞接着性が関与するエピトープを確認することによって、ワクチン及び血清診断用プローブとして用いることのできる合成ペプチドの製造が可能になる。
実施例4
治療用ペプチド(またはmAbもしくはmAbフラグメント)は、病原体の接着性分子を擬態して、白血球、内皮細胞、上皮細胞及び宿主の持つ他の標的細胞からなるグループより選択される細胞の受容体分子と反応する分子、あるいは、宿主の接着の信号または接着性分子を擬態して病原体の接着性分子と反応する治療用ペプチド(またはmAbもしくはmAbフラグメント)を含む。付着分子の接着性部位におけるペプチドドメイン及びその部位の隣にあるペプチドドメインを検出して決定するためのmAbプローブを開発することがここに記載されている。
細胞内の寄生体を複合する免疫性に関する研究は、最近ではT−細胞によって認識されたペプチド配列の同定に重点が置かれており、それは種特異性の保護作用のあるエピトープを発見すること、またTh2の応答パターンに対してTh1の理解のある選択をすることといった二重の目的を伴うことが多い。この点に関しては、“Adjuvants,endocrines and conserved epitopes; factors to consider whendesigning”therapeutic vaccines”と題された、Rook, G.A., Stanford,J.L., Medical Microbiology, UCL Medical School, London, U.K.の、Int. J. Immunopharmacol.(英国)、Feb. 1995, Vol.17, No.2, pp.91−102 を参照のこと。
しかしながら、本発明は、Th2のリンパ球活性に対するTh1のバランスがエピトープによって決まるのではなく、むしろ細菌成分のアジュバントの影響によって決まること、また、局所の内分泌効果はリンパのノードマクロファージにおける酵素の作用で、プロホルモンが活性な代謝物に変換することによって仲介されることを示している。サイトカインは、これらの経路においてメディエーターとしての役割を果たす。慢性疾患の状態では、T−細胞の機能がTh2の方向にシフトする傾向がある。発明者らは、アガラクトシルIgGについて推定されている役割などのこの傾向の免疫性病理論上の結果は内分泌系の変化が関与していることを示唆しており、それがサイトカイン−視床下部−下垂体−副腎の軸によってのみもたらされるのではなく、過剰なレベルのTNFアルファ、TGFベータ、及びIL−6のようなサイトカインが末梢の内分泌器官に直接作用することによってももたらされることについて説明している。発明者らは、複合微生物に対する保護的な細胞−仲介型応答を行うために標的に向かうエピトープが、通常は種特異的でないことを明らかにしている。
結核では、種−特異性の成分に対する細胞性の応答が保護作用というよりむしろ免疫病理学と関連していることが明らかである。本発明の原理を応用すると、多剤−抵抗性疾患などの結核の免疫治療に対して顕著な効果をもたらす。
実施例5
モノクローナル抗体の製造
モノクローナル抗体は、以前の刊行物(10,11)で報告された充分に確立されている手法にしたがって製造する。ハイブリドーマは、接着作用が陽性の大腸菌またはカンジダアルビカンス(Candida albicans)の抽出物より調製した精製ずみの接着性物質のいずれかを用いて免疫化したマウスの脾臓−誘導型B−細胞より作られた。すべての場合において、Balb/cマウスは生後8−12週間のものを、ハイブリドーマ及び抗体製造のために用いた。
免疫感作のプロトコール: 一次免疫感作用抗原は、0.5mlのPBSに懸濁し、CytRx7 TiterMaxJ ♯R-1 に50/50の比率で乳化させた接着性ワクチン、10−20μgに調節した。全ての場合、皮下注入(SC)によるルートをマウスの毒性反応を回避する目的で用いた。免疫化したマウスは14日間飼育し、ELISAによって抗体応答をテストした。力価が低い場合には、同じ用量の抗原でそのマウスを追加抗原刺激し、28日間飼育してからテストを行った。この工程を、二つの抗原によってもたらされる目的とする抗体力価になるまで2週間の間隔をおいて繰り返した。
ELISAスクリーニングプロトコール: ELISAアッセイは、Costar普遍的電子対共有型表面のアッセイプレートと、細菌性抗原の結合のための標準的なプロトコールを用いた。このシステムは2段階または3段階の成長系を用いており、そこでは接着剤またはベロ毒素かUV架橋によって96ウェルのアッセイプレートに共有結合されている。第1段階の抗−接着性の特異的マウス血清またはハイブリドーマの上澄みの抗体を希釈し、接着剤を結合させてそのプレートをBSAでブロックしたあとでそのプレートウェルにおいてインキュベートした。非−特異的に結合した第1段階の反応体を除去すべく洗浄した後、ペルオキシダーゼが結合した抗−マウスの第2段階抗体をそのテストウェルに添加し、インキュベートを行ってから洗浄した。続いて基質をそのウェルに添加して、自動化ELISAプレート読み取り機を用いて連続的に読み取りを行うアッセイを進行させた。目的とする感度が得られない場合には、シグナルを増幅させるために第3段階を行った。
ハイブリドーマ融合プロトコール: 抗−接着性及び抗−ベロ毒素ハイブリドーマをサブクローニングして選別した。即ち、1)ハイブリドーマ細胞数が充分であるならば、「HAT」培地で限定的に希釈することによってサブクローニングが行われる。2)mAb−陽性のサブクローンをうまくELISAスクリーニングし、抗−接着性mAbを大量に製造するために、そのハイブリドーマを血清を含まない培地に適合させた。
実施例6
病原体−標的細胞の相互作用
病原体−標的細胞の剪断依存性の相互作用の分析を、下記に記載したように誘導した。白血球/内皮細胞の相互作用を、これらの研究でモデルシステムとして用いた。
新しく単離した標的細胞の調製− 因子III であってLDL−受容体陽性のヒトのへその緒の内皮細胞(HUVEC)と商業的に入手したHUVEC[内皮細胞成長培地(Clonetecs, EGM)中で培養される]、またはE−セレクチンcDNAトランスフェクタントを、剪断実験の少なくとも24時間前に滅菌ガラスからなる直径1.36mmのキャピラリー管(Drummond Scientific、Broomall, Penn)の内部表面にコンフルエントに達するまで成長させた。アッセイを行う4時間前に、その内皮細胞をIL−1(1ユニット/ml)を用いて処理することによって、E−セレクチンと他の接着性分子を発現させた。
腸の上皮細胞は、ウシ胎児の小腸を単離して切開し、続いてハンクスの平衡塩類溶液中でトリプシン−EDTAを用いて処理することによって単離した。細胞を植え付け、T−25フラスコでコンフルエントに達するまで増殖させてから収集し、液体窒素中で凍結した。その細胞を、以前よりウシ上皮細胞に特異的であることがわかっていて、95%の上皮細胞よりも多いことがわかっている抗−ウシモノクローナル抗体を用いてそれらの表現型についてテストした。
上皮細胞を解凍し、上皮細胞生長培地内のボロシリケート製のキャピラリー管(内部の直径が1.3mm)に植え付け、コンフルエントに達するまで増殖させた。上皮細胞を含むキャピラリー管を、100mMのPMAを用いて4時間活性化させるか、または活性化しないで閉じた再循環型の剪断ループシステムに導入した。
剪断分析の誘導− 管の形成は、ガラス製のキャピラリー管の一端にとりつけることによって、培地及び細胞が再循環する閉じたループを形成し、続いてその管を逆さの顕微鏡に取り付けた。スピード可変型のぜん動ポンプを用い、流れをin vivo での流れの剪断条件(1−3ダイン/cm2)を模擬するように調節した。循環ループは、HUVECの相互作用性の表面を通過して白血球が連続的に再循環している間に、種々のmAbを多数回注入できるようになっている。逆さの顕微鏡ビデオ−捕獲システムは機械化段階で用いられるものであるが、それは標的細胞の単層が完全な長さで残るようにし、続いて行う分析の際の相互作用の領域を高い分解相のコントラストで記録できるようにした。球に結合させたりまた微生物を単層にしてプランクトン型にしたりといった接着が確立されており、それは少なくとも10分間、ビデオテープを動かしつつ連続的にモニターでき、その間コントロールまたは実験条件は整えられて、維持されていた。細胞の相互作用は更に10分間、観察してビデオテープに記録した。活性化されたBUVEC、即ち上皮細胞の回転に乗っている細胞の数は、接着性変形体を注入する前と後でモニターし、その記録の個々のフレーム分析を行うことによって測定した。データは、時間当りに見える範囲内に回転している細胞の数として記録した。回転スピード及び回転の挙動性などのパラメーターも分析した。
実施例7
抗−細菌性ペプチドのファージ親和性精製法
mAbによって結合したエピトープを運搬するファージの親和性精製法は、次のように行った。即ち、ファージのノナペプチドディスプレイライブラリーから得られる1×1022個のファージを、4mgの抗−接着性ブロッキングmAbで複合化した1.0mlのセファロースビーズに結合させた。このビーズを4℃で16時間、緩和に反転させてファージと混合した。続いてこの混合物を5mlのプラスチックカラムバレル(Evergreen)にかけ、結合していないファージを50mlのファージ緩衝液(50mMのトリス−Cl、pH7.5、150mMのNaCl、0.5%のトゥイーン20(v/v)、1mg/mlのBSA)を用いて洗浄することによって除去した。結合したファージは2.0mlの溶出用緩衝液(0.1Mのグリシン、pH2.2)を用いてカラムから溶出し、その溶出液のpHを2Mのトリズマ塩基を4滴入れることで直ちに中和した。ファージの力価(ノナペプチドライブラリー)は、標準法にしたがってプラークアッセイ法によってそれぞれのカラムの溶出物について測定した。このカラムマトリックスは、第2回目、第3回目の親和性精製法で再利用するために、10mlのPBS、pH7.0で洗浄し、続いて0.02%のアジ化ナトリウムを含む3.0mlのPBSを用いてさらに洗浄してから保存した。このカラムは次の親和性精製法で用いるときまで4℃で保存し、再利用するにあたっては、増幅させたファージと混合する前に20mlのファージ用緩衝液を用いてすすぐことによって調製した。抗体−特異性の選別法でのコントロールとしてビーズに抗体を結合させていないカラムを調製し、ファージの親和性精製法のすべてのステップをこのコントロールカラムについて行い、得られたファージのサンプルを配列決定することによって、抗−SEまたはPA接着性ブロッキングmAbによって認識されるペプチド配列を決定するデータを提供することができた。
実施例8
ウシの腸の細胞における大腸菌(E. coli)の接着性
現在では、肉のサンプル中におけるVTECの検出及び同定は、根を詰めた仕事であるとともに技術的に困難な従来の培養による血清学的方法に基づいている。収穫前にVTEC微生物を食品動物中で検出することは、食物が運搬する腸の疾患の起こり易さを減少させる最も有効な手段であることは明らかであり、それは、すべてのVTECによって剪断される二種の有毒な因子、即ち、時にはベロ毒素と言われる志賀毒素様毒素(slt)及び腸内細胞との特異的な相互作用を促進する接着性タンパク質(接着剤)の抗原性を利用する高い特異性を持つ診断用の道具を開発するためのアプローチである。発明者らは、臨床上のサンプル、即ち試料の便中において死んでいてもよいし生きていてもよいか、VTEC微生物を同時に「捕獲し」、かつ同定する診断用アッセイを用いて、試料の便中に含まれるVTECを単離して同定する。このアッセイで用いられる検出試薬は、VTECの接着性エピトープに対するモノクローナル抗体と、志賀毒素様毒素(slt)に対するモノクローナル抗体である。
このアプローチに対する合理性は、VTECの有毒な因子によって促進される二つの結果が、VTEC−誘導性の腸内疾患に特徴があるというたくさんの観察(4、5、6、7、8)に基づいている。これらは大腸の微絨毛の接着性−仲介型付着と除去(A/E)、ベロ毒素−誘導型の出血、及び腎臓障害である。有毒な因子として、VTEC接着性とベロ毒素は、抗原性があり、抗体−ベースのアッセイ技術に用いられる高い特異性のマーカーを意味する。VTECは二種の抗原的に区別できる接着性タンパク質を有しており、それは共同して機能するか、あるいは微絨毛にVTECの付着を単にもたらすためのみ機能する。一つ目の接着性タンパク質は索形成繊毛(BFP)とも言われる遺伝子座をエンコードするプラスミドのフィムブリエ遺伝子産物である。このフィムブリエの接着は、微絨毛に非−親密性の、即ち局所的な接着を促進するらしい。二つ目のものはOMP接着剤とも言われる94−kDaの外側の膜のタンパク質(OMP)であり、腸内細胞と親密な接触を促進する。
材料及び方法− 簡単な免疫磁性のビーズは、商業的に、例えば、Dynal から入手し、Dynal によって推奨されているプロトコールを用いて、接着剤またはSLTmAbを用いて被覆した。本質を述べると、このビーズを適当な量のmAbを用いて30分間、4℃で混合し、磁性粒子濃縮器中で収集し、5回洗浄してから最終的に緩衝液に懸濁した。リン酸−緩衝化食塩水(PBS)に懸濁したさまざまな濃度のVTECを被覆したビーズと反応させることによって、このビーズの捕獲効率を測定した。このビーズに付着した細胞をDAPIを用いて染色し、エピ蛍光顕微鏡法を用いて検査することによって付着した細胞の数を測定した。肉汁培養物の上澄みの液体に含まれるsltを検出するために、抗−sltで被覆した磁性のビーズを用いて遊離のsltを捕らえ、次の蛍光物質でラベルした抗−sltが関与するサンドウィッチ法を用いて同定した。
大腸菌株の懸濁液、即ち3A(R.A. Wilson, Penn State Universityから入手)と932(U. S. E. P. A.から入手)を血液寒天プレートとトリプトン培地上で増殖させてから、そこから収穫し、磁気化されたビーズに接合させるため、そして剪断分析を行うために生きたまま、またはホルマリンで固定化して用いた。ループシステムにウシの上皮細胞(上記を参照)を満たしたキャピラリー管を組み入れると、培地としてハンクスバランス塩溶液、即ちHEPES(pH7.0)を用いた場合、フロー−誘導性の剪断力は2ダインで流れのピークを持つ脈動する波として確立した。大腸菌被膜を施したビーズは、PBSに懸濁されていて、注入口から剪断的な流れに拡散した。大腸菌被膜を施したビーズと上皮細胞との相互作用は、ビデオマイクロスコピーによって観察し、永久記録としてビデオテープに記録したが、それはオフ−ライン形のコンピュータイメージ分析を行うためでもある。ビーズ結合性の大腸菌の接着性は、接着性の相互反応のタイプ(回転式または据置式)、特徴(一個のビーズか集合したビーズか)、及び接着性の相互作用の数について、それぞれの状態の分析に対して10分間の相互作用の間隔をおいて分析した。ハイブリドーマ及びモノクローナル抗体は、大腸菌の0157菌株の種々の細胞表面決定基を認識する免疫化したマウスの牌臓細胞から産生した。0157:H7がウシの腸内細胞に剪断力依存性で接着していることを証明することにより、ウシの細胞に細菌性の付着分子と結合構造が存在して機能していることが確信された。接着性は、接着の発生を明らかに助長する微生物の培養状態(血液寒天上の生長)に依存していた。血清は、「肉汁で増殖させるか血液寒天で増殖させるか」という0157大腸菌の培養状態によって促進された抗原性の違いを認識する。このデータは、肉汁において増殖させた細胞では認められなかったこれらの工程によって認識される、血液寒天が特異的細胞表面の接着の発生に影響を与えることを示唆している。懸濁液から大腸菌0157:H7を捕獲することは、インキュベート方法にはもちろん依存しているが、用いた磁性粒子のタイプと量にも依存している。1×105 CFU/mlに含まれる細胞の98%までを、これらの方法を用いた実験室での条件で捕獲することかできる。付着した細胞の60%だけが、溶出剤によって磁性粒子から除去された。地上のビーフサンプルに接種したほとんど0157のほとんど100パーセントは、免疫磁性の分離(IMS)工程の改善によって検出した。
発明者は、数個のペプチド及びそれらのcDNA配列を確認し、それらをワクチン供給システムに組み入れる。これらのペプチドにはa)大腸菌0157:H7のベロ毒素のBオリゴマーの接着性領域を擬態するKPHTHKHKVからなるアミノ酸配列を持つペプチド11、及びb)大腸菌0157:H7のもう一つのBオリゴマーの接着性領域を擬態するDDTFTVKVDGからなるアミノ酸配列を持つペプチドDGが含まれる。
実施例8の参照文献
1. Karmali, M.A.., 1989. Infection by verocytotoxin-producing Escherichia coli. Clin. Microbiol. Rev. 2:15-38.
2. Wells, J.G., L.D.Shipman, K.D.Greene, E.G.Sowers, J.H.Green,D.N.Cameron, F.P.Downes, M.L.Martin, P.M.Griffin, S.M.Ostroff,M.E.Patter, R.V.Tauxe, and I.K.Wachsmuth. 1991. Isolation of Escherichia coli serotype 0157:H7 and other shiga-like toxin-producing E.coli from dairy cattle. J. Clin. Microbiol.29: 985-989.
3. Doyle, M.P., and J.L. Schoeni. 1987. Isolation of Escherichia coli 0157:H7 from retail fresh meat and poultry. Appl. Environ.Microbiol.53: 2394-2396.
4. Pyle, B.H., S.C.Broadway, and G.A.McFeters. 1995. Arapid,direct method for enumerating respiring Escherichia coli in water. Appl. Environ. Microbiol. 61: 2614−2619.
5. Junkins, A.D. and M.P.Doyle. 1989. Comparison of adherence properties of Escherichia coli 0157:H7 and a 60-maga-dalton plasmid−curedderivative. Cirr. Microbiol. 19:21−27.
6. Tzipori, S., R.Gibson, J.Montanareo. 1989. Nature and distribution of mucosal lesions associated with enteropathogenic and enterohemorrhagic Escherichia coli serotypes in piglets and the role of plasmid−mediated factors. Infect. Immun.57:1142-1150.
7. Tesh, V.L. and A.D.O'Brien. 1992. Adherence and colonization mechanisms of enteropathogenic and enterohemorrhagic Escherichiacoli. Microb. Pathog. 12:245-254.
8. Louie, M., J.DeAzavedo, R.Clarke, A.Borczyk, H.Lior, M.Richter and J.Brunton. 1994. Sequence heterogeneity of the eae gene and detection of verotoxin-producing Escherichia coli using serotype-specific primers.Epidemiol. infect. 112: 449-461.
実施例9
カンジダアルビカンスの接着性分子及び臨床試料における力価の検出
カンジダアルビカンスは、ヒトに隙があると発症する真菌性の疾患の最もありふれた原因であり、それは病院の血液流感染症が起こる場合の第4番目に引き起こされる原因となっている(15)。広まったカンジダ症(candidasis)の病因論で重要なステップは、宿主内の特異的な組織の位置に付着するカンジダ(Candida)細胞の能力に関係しているらしい(7)。適当な真菌分子をサーチすることがつまらないわけではないが、カンジダアルビカンス(C. albicans)の表面抗原性の形成は、in vi tro(3、4、5)及びin vivo (6)のどちらにおいても可変である。最近ではCutlerらが、カンジダアルビカンス酵母細胞が脾臓に隣接するゾーンのマクロファージ及び周辺のリンパ節の特定の領域にあるマクロファージに接着するために応答するカンジダの接着剤を単離した(10)。この接着剤は、ホスホマンノタンパク質複合体(PMC)のマンナン部分(12)の一部であり、細胞表面の大部分を表示する。ある種の接着剤は、PMCの酸に不安定な部分に局在しているβ−1,2−リンクのテトラマンナンとして同定されており、別の接着剤は、複合体(11)の酸に安定な部分に存在する。したがって、患者の血清中に含まれるマンナン接着剤を検出することは、疾患について信頼のある指標となることがわかるであろう。この接着性は、真菌が増殖する際に豊富に産生され、容易に細胞表面から分離される。カンジダの接着性部位に特異的で高い親和性を持つモノクローナル抗体を用いると、本発明にかかる、広まったカンジダ症に対する迅速で、そして信頼性のあるテストを開発するに至る。
患者の血清中に真菌性の接着が存在すると、疾患が活性であることを示しており、コロニーを形成していない。カンジダのマンナンは真菌の増殖の際に自発的に放出されるため、アッセイはこのポリサッカライドを検出するように設計される(8)。
診断用溶液を形成するためのアプローチには、患者の体液や細胞に含まれるカンジダ抗原を、高度に特異的なモノクローナル抗体(mAb)、即ち体内で生長して運ばれ始める場合にその微生物から分離されたり放出されたりするカンジダ抗原に指向するモノクローナル抗体(mAb)を用いて早期にそして迅速に検出することが含まれる。本発明は、感染したマウス及びヒトに存在するカンジダ抗原を検出するために、カンジダ細胞の表面抗原の配列に対して特異的なmAbのパネルをテストする。抗−接着性モノクローナル抗体及びin vitroでカンジダアルビカンスによって分離されるかそこから抽出される未知の細胞表面の決定基に指向するモノクローナル抗体の開発及び利用は、感染したマウス及びヒトの体液や細胞に存在するカンジダ抗原を検出するためのものとなるであろう。発明者らは、カンジダアルビカンスのホスホマンノタンパク質接着剤の領域を擬態するアミノ酸配列を持つカンジダペプチドを開発する。
カンジダ抗原を検出するためのELISAテストの開発
本発明は、血清及び宿主細胞においてカンジダ接着か存在することを検出するキーとなるアッセイを提供する。このアッセイは、抗体捕獲/サンドウィッチELISA法を用いている。カンジダアルビカンス抗原に特異的な捕獲抗体は、ポリスチレン製のマイクロタイタープレートの表面を被覆するために用いた。結合しなかった捕獲抗体を適当に洗浄して除去し、かつそのプラスチックプレート上の反応しなかった部位をブロックした後、カンジダ抗原を含む血清を抗体−被膜したウェルに添加し、インキュベートしてから結合しなかった血清を除去すべく洗浄した。この抗原に特異的な二つ目の抗体をそのウェルに添加し、前の捕獲抗体に結合した抗原と反応するようにしてから結合しなかったすべての物質を除去するために洗浄した。この第2の抗体に特異的であってかつ適当な酵素が共有結合で結合した第3の抗体をそのウェルに添加することによって、ウェル中に含まれる全ての第2の抗体に結合させた。結合しなかった第3の抗体を洗浄した後、第3の抗体の持つ酵素に対して特異的な適当な発色性の基質をそのウェルに添加した。適当な正のコントロールと負のコントロールに比較したところ、このウェル中の色彩反応によって初めのテスト用血清に含まれていたカンジダ抗原の存在を検出できた。抗原−刺激した正常マウスの血清中に含まれる最小量のCandida抗原が検出できるように、一旦、ELISAアッセイを最適化してから、さまざまな度合の出血性カンジダ症が広まっているヒト及びマウスから得られる血清を検査した。
マウス及びヒトの「淡黄褐色の被膜」を持つ細胞及び血清に対するカンジダ可溶性接着の検出
分離したカンジダ細胞表面の決定基かカンジダアルビカンスで感染して早期に発生する末梢の白血球細胞に付着することは、感染した患者から新しく採取した血液の淡黄褐色の被膜を持つ細胞を用いて迅速な診断用テストを行う際の基礎として作用する。
抗−接着性のmAb及びmAbは、(a)感染したマウスから得られる血液の「淡黄褐色の被膜」の層として表わされる末梢血液の白血球、(b)抗原−刺激を行ったヒト及びマウスの淡黄褐色の被膜を持つ細胞(in vitroで結合する)、及び(c)現存しているmAb及び新しいmAbを利用するカンジダアルビカンスで感染させた患者から得られるヒト血清のサンプルに接着する可溶性のカンジダ細胞表面の決定基の細胞内分布を検出し、測定するために開発した。淡黄褐色の被膜を持つ白血球上のカンジダ抗原の分布は、フローサイトメトリーを用いて行う細胞群の分析法と、免疫蛍光法またはELISA法を用いて行う抗原の検出法とを組み合わせることで測定した。
抗体試薬のパネルは、カンジダアルビカンスで感染させたマウス内の分離した細胞表面抗原を検出する際に用いることができる。カンジダ細胞表面の決定基を含有するワクチン調製物は、カンジダアルビカンスの化学的抽出液から、またはカンジダ培養物の上澄みから調製し、マウスを免疫感作するために用いた。カンジダ細胞表面のワクチンは、a)カンジダアルビカンス培養物の上澄みにある分離した細胞表面決定基、b)カンジダアルビカンスのEDTA抽出物、及びc)カンジダアルビカンスの2−ME(2−メルカプトエタノール)抽出物から調製した。
ハイブリドーマは、カンジダアルビカンス細胞表面の決定基に応答する力価の高いポリクローナル抗体を作り出す動物の脾臓細胞から調製した。ハイブリドーマを作るための方法と、モノクローナル抗体を製造するための方法は、上記に記載されている。
カンジダ接着に向かうモノクローナル抗体を用いて研究を行った結果は、カンジダによって発生するホスホマンノタンパク質(PMP)が血清中に1−10ngの範囲内で含まれるのを検出できることが明らかになった。そのうえ、カンジダの抗原性についての別の研究では、カンジダアルビカンスについての血液培養物が陰性の場合でさえも、感染したマウスの70.4パーセントにカンジダの接着を検出できることを示していた。これらの研究は、カンジダ感染症に対する高い感受性の診断用アッセイを提供する。
発明者らは、マウスを受動的に免疫感作することによってカンジダアルビカンスと戦えることがわかっているモノクローナル抗体調製物を用いてファージディスプレイライブラリーを探索することにより、PMPのキーとなる接着性ドメインを擬態するペプチドをうまく製造した。このペプチドは、カンジダアルビカンスが宿主の標的細胞に付着するのを遮断できることが明かである。現在では、オリゴヌクレオチド配列は、ペプチド配列データから合成することができ、そして生きたベクター〔例えば、ネズミチフス菌(Salmonella typhimurium)または赤痢菌(Shigella)の菌株〕に挿入するためのプラスミド構築物に導入される。得られる組換えワクチンは、成体のマウスに経口投与され、その後で粘膜と全身性の免疫応答についてアッセイが行われる。
実施例9の参照文献
1. Anttila, V.J., P.Ruutu, S.Bondestam, S.E.Jansson, S.Nordling,M.F'arkkil'a, A.Sivonen, M.Castren, and T.Ruutu. 1994. Hepatosplenic yeast infection in patients with acute leukemia: a diagnostic problem. Clin. Infect. Dis. 18:979-981.
2. Berenguer, J., M.Buck, F.Witebsky, F.Stock, P.A.Pizzo, and T.J.Walsh. 1993 Lysis-centrifugation blood cultures in the detection of tissue-proven invasive candidiasis. Diagn. Microbiol.Infect. Dis. 17:103-109.
3. Brawner, D.L. and J.E.Cutler. 1984. Variability in expression of a cell surface determinant on Candida albicans as evidenced by an agglutinating monoclonal antibody. Infect. Immun. 43:966-972.
4. Brawner, D.L. and J.E.Cutler. 1986. Variability in expression of cell surface antigens of Candida albicans during morphogenesis.Infect. Immun. 51:337-343.
5. Brawner, D.L. and J.E.Cutler. 1986. Ultrastructural and biochemical studies of two dynamically expressed cell surface determinants on Candida albicans. Infect. Immun. 51:327-336.
6. Brawner, D.L. and J.E.Cutler. 1987. Cell surface and intracellular expression of two Candida albicans antigens during in vitro and in vivo growth. Microbial. Pathogen. 2:249-257.
7. Cutler, J.E. 1991. Putative virulence factors of C.albicans.Ann. Rev. Microbiol. 45:187-218.
8. de Repentigny, L., R.J.Kuykendall, F.W.Chandler, J.R.Broderson,and E.Reiss. 1984. Comparison of serum mannan, arabinitol,and mannose in experimental disseminated candidasis. J. Clin.Microbiol. 19:804-812.
9. Han, Y. and J.E.Cutler. 1995. antibody response that protects against disseminated candidiasis. Infect. Immun. 63:2714-2719.
10. Han, Y., N.van Rooijen, and J.E.Cutler. 1993. Binding of Candida albicans yeast cells to mouse popliteal lymph node tissue is mediated by macrophages. Infect. Immun. 61:3244-3249.
11. Kanbe, T. and J.E.Cutler. 1994. Evidence for adhesion activity in the acid−stable moiety of the Phosphomannoprotein complex of Candida albicans. Infect. Immun. 62:1662-1668.
実施例10
ベロE6細胞へのハンタウイルスの接着の特徴
ヒトにおけるハンタウイルスの感染症を検出するための満足のゆく診断法及びそのウイルスを阻止するためのワクチンはこれまでなかった。ハンタウイルスは、ウイルス抗−受容体によって細胞受容体を認識することによる感染性の工程を経て細胞に付着する。ハンタウイルスに対する細胞の受容体と抗−受容体が何であるかはわかっていない。両方の実在物の正体を明らかにすることは、抗−ウイルス薬や有望なワクチンを開発する上で特に重要である。発明者らは、ハンタウイルス感染症の接着結果と病因を特徴づける、in vitroで新規な分析的なアプローチを用いて、これらの構造を同定するとともに特徴を明らかにする。
分子のクローニング: 検出したウイルス(類)の小さな(s)ゲノムと中くらいの(M)ゲノムを標準法(5)を利用してクローニングし、プライマー(M−3’(+)、M−5’(−)、S−3’(+)、S−5’(−)、M−OP(+)、など)を用いる。
発明者らが発見したMプライマー及びSプライマーは、ハンタウイルスの小さなゲノムと中間のゲノムをそれぞれクローニングするために用いられる。cDNAは、大腸菌またはバキュロウイルス(Baculovirus)ベクター(細菌性のトランスフェクタント)にサブクローニングすることによって発現させる。大腸菌で発現させるためにはInvitrogenより提供されているpRSET及ひpTRCHisキットが、またバキュロウイルスで発現させるためにはInvitrogenのpBluBacHisキットが用いられる。組換えタンパク質は金属キレートクロマトグラフィー(Invitrogen)によって精製する。ハンタウイルスのエンベロープの糖タンパク質であるG1及びG2は、宿主細胞に対する接着性を研究する際のターゲットとして働く。
モノクローナル抗体の製造: 大腸菌またはバキュロウイルスで発現させることによって作った組換え抗原を用いてモノクローナル抗体を合成するためにはマウスを用いる。組換え体で動物を感染させるため、即ち免疫化するために生きたウイルスは用いられない。BALB/cマウスは、組換えタンパク質(G1、G2またはN)をPBSに懸濁させ、CytRxタイターMax#R−1で50/50の比率で乳化したもの用いて皮下注射で免疫感作する。
抗体検出法: 全ての抗体検出法は、シンノンバーウイルス(Sin Nombre virus)の検出のためにthe Centers for Disease Control(CDC)によって開発されたELISAによって行なわれる。この方法は、半−定量的であり、ヌクレオキャプシッド抗原(N)に対する抗体のみを検出する。このアッセイは、標準的なELISAにおいて糖タンパク質であるG1及びG2の組換え抗原の発現体を用いることによって発展させることができる。エンベロープタンパク質は、ウイルスの感染力を中和する際に重要であると考えられる。
接着性のアッセイ: ハンタウイルス受容体及び抗−受容体分子の性質及び機能を調べようとして接着結果を分析する際には、ベロE6標的細胞を用いて大腸菌で発現させた組換え抗原の使用が関与する。エンベロープの糖タンパク質であるG1及びG2やヌクレオキャプシッド抗原(N)を発現するE. collは、G1、G2またはNタンパク質に向かうmAbで被覆した常磁性のビーズと反応させ、ここに記載した工程に従って剪断力のあるところで検査する。
実施例10の参照文献
1. Duchin, J.S., F.T.Koster, C.J.Peters, G.L.Simpson, B.Tempest,S.R.Zaki, T.G.Ksiazek, P.E.Rollin, S.Nichol, E.T.Umland, R.Moolenaar, S.Reef, K.Nolte, M.Gallaher, J.Butler, and R.Breiman.1994. Hantavirus pulmonary syndrome: a clinical description of 17 patients with a newly recognized disease. . N. Engl.J. Med. 330:949-955.
2. Foucar, K., K.B.Nolte, R.M.Feddersen, B.Hjelle, S.Jenison,J.McLaughlin, D.A.Madar, S.A.Young, S.R.Zaki, and L.Hughes.1994. Outbreak of Hantavirus pulmonary syndrome in the southwestern United States. Response of pathologists and other laboratorians.Am. J. Clin. Pathol. 101:S1-58.
3. Nichol, S.T., C.Spiropoulou, S.Morzunov, P.Rollin, T.Kasiazek,H.Feldmann, A.Sanchez, J.Childs, S.Zaki, and C.J.Peters. 1993.Genetic identification of a hantavirus associated with an outbreak of acute respiratory illness. Science 262:914-917.
4. Childs, J.E., T.G.Ksiazek, C.F.Spiropoulou, J.W.Krebs, S.Morzunov, G.O.Maupin, K.L.Gage, P.E.Rollin, J.Sarisky, R.E.Enscore,J.Frey, C.J.Peters, and S.Nichol. 1994. Serologic and genetic identification of Peromyscus maniculatus as the primary rodent reservoir for a new hantavirus in the SW United States. J.Infect. Dis. 169:1271-1280.
5. Ausubel, F., R.Brent, R.Kingston, D.Moore, J.Seidman, J.smith, and K.Struhl. 1995. Current protocols in Molecular Biology. Grennne Publishing Associates and Wiley-Interscience,New York.
実施例11
ウシの標的細胞への三鞭毛トリコモナス(Tritrichomonas foetus)の付着
三鞭毛トリコモナス(T. foetus)は、アメリカ合衆国全土の畜牛の持つ重要な原性動物病原体であり(1)、それは相当数の胎児の死亡と一過性の不妊症を生じさせ、それによって実質的な経済的損失を引き起こす。この寄生体は、畜牛の生殖管に制限されて存在し、一つの形態学上の型ではないが栄養体を有していて、それは生殖管の粘膜表面上に残っていて、妊娠中の動物では起こらないが胎盤を侵す。三鞭毛トリコモナスはまた、胎児の組織である例えば肺、腸の上皮及び肩甲骨下のリンパ節などの組織を侵す(4)。これらの結果はin vitroでの実験から得られる結果(2、3)と同様に、三鞭毛トリコモナスが組織や、そのような組織を続いて寄生体が侵すことを可能にする細胞表面に付着することを示唆している。
発明者らは、三鞭毛トリコモナスが哺乳動物の標的細胞を殺したり赤血球を溶解したりてきること(2)、また三鞭毛トリコモナスに対する表面−反応性の抗体か細胞毒性に対抗して保護作用を持っていて、三鞭毛トリコモナスが標的細胞に付着するのを遮断すること(3)について明らかにしている。さらにこの結果は、三鞭毛トリコモナスの接着性の乏しいクローンに比較すると高い接着性を持っているクローンによる細胞毒性を高めることを示している(3)。これらの結果は、標的に接着する三鞭毛トリコモナスの能力が寄生体に、効率的な細胞毒性の能力を与えることを示している。これらの結果はまた、抗体が損傷からウシ組織を保護することか可能な一つの機構が、接着や何らかの他の接触依存的な細胞毒性の観点を妨害することによるものであることを示唆している。全体の三鞭毛トリコモナスのウエスターンブロットを用いて表面−反応性で阻害性のmAb(32.3B3.4)の反応から得られるデータは、このmAbが約190,000MWのバンドを非−還元性のゲル上で認識し、また還元性のゲル上で140,000及び60,000MWのバンドを認識することを示しており(3)、それは発明者らがTf190と命名した分子である。このように畜牛(5)やマウス(3)における免疫原性の高い分子量の表面分子は、接着や哺乳動物の細胞に対する細胞毒性に関与している。
発明者らは、三鞭毛トリコモナスの哺乳動物細胞への接着性についてTf190に特異的な抗体の効果を評価している。畜牛は親和的に−精製したTf−190を用いて免疫感作し、そしてこれらの畜牛から得られる抗体の抗−接着性の特徴をこの明細書に記載したMIT剪断アッセイを用いて評価する。精製したTf190と反応する別のmAbも同定し、三鞭毛トリコモナスの噛乳動物細胞への接着性についての効果を評価する。別のmAbは精製したTf190に対して調製し、寄生体の付着性と同様に、それらの効果についてスクリーニングする。Tf190に対する抗体及びmAbの特異性は、精製したTf190について行ったドット免疫結合分析法と、三鞭毛トリコモナス及ひTf190の全抽出物のウエスターンブロット法を用いる抗体の反応によって確立した(3)。
実施例11の参照文献
1. BonDurant, R.H., and B.M.Honigberg. 1994. Trichomononads of Veterinary Importance. In,“Parasitic Protozoa”, 2nd edition,J.P.Kreier, ed., 9:111-188.
2. Burgess, D.E., K.F.Knoblock, T.Daugherty and N.P.Robertson.1990. Cytotoxic and hemolytic effects of Tritrichomonas foetus on mammalian cells. Infec. Immun. 58:3627-3632.
3. Burgess, D.E., and C.M.McDonald. 1992. Analysis of adhesion and cytotoxicity of Tritrichomonas foetus towareds mammalian cells with monoclonal antibodies. Infection and Immunity 60:4253-4259.
4. Rhyan, J.C., K.L.Wilson and D.E.Burgess. 1994. Immunochemical detection of T.foetus in formalin-fixed paraffin-embedded sections of bovine placenta and fetal lung. J. Vet. Diagn. Invest.25: 350-355.
5. Corbeil, L.B., J.L.Hodoson, D.W.Jones, R.R.Corbeil, P.R.Widders and L.R.Stephens. 1989. Adherence of Tritrichomonas foetus to bovine vaginal epithelial cells. Inf. Immun.57:2158-2165.
6. Huang, J-C, D.Hanks, W.Kvasnicka, M.Hanks and M.R.Hall.1989. Antigenic relationshipsamong field isolates of Tritrichomonas foetus from cattle. Amer. J. Vet. Res. 50:1064-1068.
実施例12
細菌接着性分子のサブユニット成分の調製のための材料及び方法、並びに診断用試薬、治療用化合物及びワクチン材料として使用するための宿主細胞上のそれらの受容体。
次の方法は、治療用(遮断用)化合物として利用するため、または組換えワクチンに挿入するための細菌接着性分子の隣接するドメインを含む接着性ドメインまたは部位からなるサブユニット成分を合成するために、本発明者らか開発または採用した方法である。ワクチン配合剤に含まれる付着部位内及びその周辺にある多数のペプチドドメインを使用すると、宿主での免疫応答を刺激する抗原性のペプチドを確実に導入することができる。下記に記載した材料及び方法は、接着性の診断薬、治療用ペプチド及び炭水化物、並びに請求の範囲で表示された病原性の微生物の4つのクラスのどれかに対する組換えサブユニットワクチンの開発に適用される。
細菌性の接着システムの検出及び特徴付け
宿主細胞で発現した分子を擬態する病原体の接着性(付着性)分子(PAM)を単離することは、接着性分子のためのリガンドまたはキャピラリー管の反応容器からなる管の表面に被覆された精製されたリガンドを発現する標的細胞を用いるin vitroでの剪断アッセイシステムを発明者らか検出し特徴付けることから始まる。あるタイプの細胞−細胞接着性相互作用について、高い生理的剪断力と低い生理的剪断力のあるところで分析を行うための小さなキャピラリー管の内部表面に種々の接着性基質を形成するための方法は、発明者らによって開発されており、また完成されている(Bargatze, R.らの、1994. J. Immunol. 152: 5814-5825、Jutila, M.らの、1994. J. Immunol.153: 3917-3928、Bargatze, R.らの、1994. J. Exp. Med. 180: 785-792 参照)。
PAM及びそれらのリガンドの検出及び特徴付けでは、in vitroでの分析的な剪断フロー装置(図2参照)が用いられ、それは生理的剪断を擬態している間、固定化基質上を表示するか、または内皮と上皮の細胞もしくは他の標的細胞からなる細胞を表示するリガンドアセンブリのパネルを用いて細菌の接着性相互作用を再生可能なリアル−タイムのモニターを行うとともに定量を行う。このシステムは閉じたキャピラリーループからなり、そこでは液体がぜん動ポンプによって再循環している。このループに注入された細胞の拡散は、血管系の血流を暗示するキャピラリー管の内部表面を被膜する標的細胞の単層と衝突してもたらされる。続いて起こる細菌の細胞と標的細胞またはリガンドを運搬する基質との接着性の相互作用は、専門的なグレードのビデオデータ取得と記録システムを用いて分析する。マッキントッシュコンピュータシステム(Apple Computers,Cupertino, CA)、LG−3ビデオフレーム把持ボード(Scion Corporation,Frederick, MD)、及びイメージ用ソフトウエア(NIH, Bethesda,MD)は、接着性の結果についてリアル−タイムでオフ−ライン形のビデオ分析を行うために注文してあつらえられている。
病原体−標的細胞剪断依存的な相互作用の分析は、下記のように誘導する。白血球/内皮細胞の相互作用は、発明者らが拡張して行った実験であり、それはこれらの研究についてのモデルシステムとして用いられる。
生体内顕微鏡を用いるin vivoでの剪断モデルも、無傷の動物の静脈内で見られる剪断力を模した生理的剪断力の条件で細胞の相互作用を検査するために、発明者らが開発した。注いだFITC−ラベルした微生物と手術して体外に出したマウスのパイエル板または小腸の上皮における内皮の血管との相互作用を観察し、記録することができる。標的細胞への細菌の接着では、安定な接着性アッセイも、確立された細胞系またはどれかの器官系から得られる細胞の組織部分かまたは組織の培養調製物で誘導することができる。
実施例13
固定化した標的細胞または病原体スクリーニングマトリックスの調製
固定化した標的細胞− 新しく単離した因子VIIIであってLDL−受容体陽性のヒトのへその緒の内皮細胞(HUVEC)[内皮細胞成長培地(Clonetecs, EGM)中で培養される]、または組織特異性のアドレッシンを発現することを特殊化した細胞系であるHUVEC、または受容体のcDNAトランスフェクタントを、剪断実験の少なくとも24時間前に滅菌ガラスからなる直径1.36mmのキャピラリー管(Drummond Scientific Broomall, Penn)の内部表面にコンフルエントに達するまで成長させた。アッセイを行う4時間前に、その内皮細胞をIL−1(1ユニット/ml)を用いて処理することによって、E−セレクチン、即ちICAMとVCAMを誘導するためのインターフェロンとインターロイキン−1を誘導させた。
腸の上皮細胞は、ヒトのへその緒またはウシ胎児の小腸を切開し、続いてHanks バランスの塩溶液中でトリプシン−EDTAを用いて処理することによって新しく単離される。また別法として、ヒトの上皮細胞系であるCaco−2(結腸)またはInt−407(空腸/回腸)が用いられる。Caco−2細胞系は、Salmonella typhi(Tartera, C. の、1995. Infect. Immun. 61: 3084-3089参照)、Escherichia coli(Fratamlco, P. らの、1993. J. Med. Micro. 39: 371-381参照)、Aeromonas (Nishikawa, Y. らの、1994. J. Med. Micro. 40:55-61参照)、及びKelbsiella pneumoniae (Favre-Bonte, S. らの、63: 1318-1328 参照)と結合することがわかっている。Caco−2とInt−407細胞は、RPMI1640培地(Sarem, F. らの、1996. Appl. Micro 22: 439-442 参照)で増殖させ、37℃で、5%のCO2/95%の空気よりなる雰囲気中でInt−407については5日間インキュベートした後の最後のコンフルエントに達したところで用いられ、またCaco−2については21日インキュベートした後の分化段階で用いられる。新しく単離した上皮細胞は植え付けて、T−25フラスコでコンフルエントに達するまで増殖させてから収集し、液体窒素中で凍結する。その細胞を、以前よりヒトまたはウシの上皮細胞に特異的であることがわかっていて、95%の上皮細胞よりも多いことがわかっている抗−上皮細胞モノクローナル抗体を用いてそれらの表現型についてテストする。
上皮細胞を解凍し、上皮細胞生長培地内のボロシリケート製のキャピラリー管(内部の直径が1.3mm)に植え付け、コンフルエントに達するまで増殖させる。上皮細胞のコンフルエントに達した単層を含むキャピラリー管を、100mMのPMA、即ちインテグリンアクチベーター(ケモカインズ)を用いて4時間活性化させるか、または活性化しないで閉じた再循環型の剪断ループシステムに導入する。
実施例14
PAMスクリーニングマトリックス− PAMに対する生理的リガンドを表示するマトリックスは、病原性の細菌によって用いられる細胞受容体を結合する既知の炭水化物及び糖タンパク質のカウンター−受容体から調製される。さまざまな巨大分子構造を、PAMに対する病原体を急速にスクリーニングするための診断用の物質として用いる目的で発明者らが設計している。炭水化物−末端のマトリックスを開発するために、本発明者らはSpevakらによって記載された方法(方法1)(Spevak, W. らの、1996. J. Med. Chem. 39: 1018-1020参照)を用いることによって、剪断アッセイシステムでPAMを検出したり同定したりするための炭水化物リガンドを表示する酸性の多価アセンブリを構築している。これらのマトリックスは、キャピラリー管の内壁を被覆するために用いられる支持用の糖タンパク質リガンドを足場とする酸性脂質からなる。炭水化物−末端の脂質マトリックスは、UVを用いて重合化することによって安定化する。もう一つの方法(方法2)は、メタノール中にN−グリコシドまたは糖脂質を希釈する工程、100ngの糖脂質を含む約100μlを採取して、キャピラリー管に入れる工程、及び溶媒を37℃で一晩かけて蒸発させる工程からなる。次にこの管の内腔を、燐酸緩衝化食塩水(PBS)に入れた2%ウシ血清アルブミン(BSA)、200μlを用いて2時間かけて被覆し、BSA溶液て二度洗浄してから最終的に遊離の被膜溶液を流し込む。糖タンパク質−末端のマトリックスを成長させるための方法3は、Ca++及びMg++を加えた洗浄剤を含むHBSS培地(100μg/ml)において糖タンパク質接着性分子構築物を、キャピラリー管内にて37℃で1時間、インキュベートする。次にその管を4℃に15分間冷却し、4℃に維持したHBSS培地を注ぐ(洗浄する)。発明者らは、E−、L−及ひP−セレクチン、ICAM、VCAM、MAdCAM−1並びにβ1及びβ2インテグリンを含む精製した糖タンパク質の拡張パネルを作成した。方法1、2または3を用いることで本発明者らは、剪断アッセイシステムで診断用試薬として利用できる数種の新規なPAMスクリーニングマトリックスを調製した。
実施例15
剪断アッセイ−
例えばDynal から入手できるような簡単な免疫磁性のビーズは、細胞表面の接着性または可溶性の接着剤(S−接着剤)に指向するmAbを用いて被覆する。このビーズは適当な量のmAbを用いて30分間、4℃で混合して、次に磁性粒子濃縮器中で収集し、5回洗浄してから最終的に緩衝液に懸濁する。微生物の懸濁液は増殖させてから接着性分子の発生を促進することがわかっている培地から収穫し、磁性化されたビーズに接着させるためにホルマリンで固定化し、そして剪断分析を進めるために用いる。そのビーズに付着した細胞はDAPIを用いて染色し、エピ蛍光顕微鏡法を用いて検査することによって付着した細胞の数を測定する。
可溶性接着剤(S−接着剤)、即ち肉汁培養物の上澄みの液体から大量に得られるエキソトキシンの接着性をを検出し特徴付けるために、抗−S−接着剤で被覆した磁性のビーズをS−接着剤を結合させるためにも用い、次の蛍光物質でラベルした抗−S−接着剤が関与するサンドウィッチ法を用いて同定した。ループシステムにヒトまたは動物の上皮細胞(通常は内皮細胞か上皮細胞)を満たしたキャピラリー管を組み入れると、培地としてハンクスバランス塩溶液、即ちHEPES(pH7.0)を用いた場合、フロー−誘導性の剪断は2ダインで流れのピークを持つ脈動する波として確立する。細菌−被膜を施したビーズはPBSに懸濁されていて、注入口から剪断的な流れに拡散させる。細菌−被膜を施したビーズと上皮細胞との相互作用はビデオマイクロスコピーによって観察し、永久記録としてビデオテープに記録したが、それはオフ−ライン形のコンピュータイメージ分析を行うためでもある。ビーズ結合性の細菌の接着性は、接着性の相互反応のタイプ(回転式または据置式)、特徴(一個のビーズか集合したビーズか)、及び接着性の相互作用の数について、それぞれの状態の分析に対して10分間の相互作用の間隔をおいて分析する。
抗−接着剤mAb及びペプチドを用いて接着性相互作用を遮断することについてのすべての研究は、この明細書に記載されたモンタナイムノテック(Montana ImmunoTech(MIT))剪断分析システムで誘導される。
循環ループは、HUVECの相互作用性の表面を通過して白血球か連続的に再循環している間に、種々の特異的な接着性−またはリガンド−ブロック作用のmAbを多数回注入できるようになっている。逆さの顕微鏡ビデオ−捕獲システムは機械化段階で用いられるものであるが、それは標的細胞の単層か完全な長さで残るようにし、続いて行う分析の際の相互作用の領域を高い分解相のコントラストで記録できるようになっている。球に結合させたりまた微生物を単層にしてプランクトン型にしたりといった接着が確立されており、それは少なくとも10分間、ビデオテープを動かしつつ連続的にモニターでき、その間コントロールまたは実験条件は整えられて、維持されている。細胞の相互作用は更に10分間、観察してビデオテープに記録する。活性化された内皮細胞または上皮細胞の回転に乗っている細胞の数は接着性変形体を注入する前と後でモニターし、その記録の個々のフレーム分析を行うことによって測定する。データは、時間当りに見える範囲内に回転している細胞の数として記録される。回転スピード及び回転の挙動性などのパラメーターも分析する。これらの一緒に得られた観察結果は、宿主の組織及び細胞のリガンド構造に対する細菌の接着特異性を調べるための機能を持っていて、それによって発明者らは、生理的条件の下でさまざまな試薬についてテストすることが可能になるとともに、接着性の相互作用を修飾することができるようになる。
実施例16
細菌/標的細胞(リガンド)相互作用に関わる成分または共同者を検出しかつ特徴付ける診断薬としてのPAMスクリーニングマトリックス。
PAMの構造を同定するための診断用プローブ、即ちモノクローナル抗体試薬の開発。PAMの接着性ドメイン(部位)の成分及び/またはそれらのリガンドを含むワクチン、診断用試薬または治療用ペプチドの合成は、剪断システムで検出された接着性分子とは別の領域に指向するモノクローナル抗体(mAb)を開発することと同時に進行する。モノクローナル抗体は、以前の刊行物(Berg, E. L. らの、1993. Nature 366: 695-698 、及びJutila,M.らの、1994. Adv. Pharmacol. 25:235-262)で報告された白血球/内皮細胞相互作用で関与する接着系を検出するとともに、特徴付けるための充分に確率されている手法にしたがって製造する。抗−接着性抗体を産生するハイブリドーマは、接着作用が陽性で手をつけていない無傷の細菌細胞または接着作用が陽性の細菌の細胞壁抽出物(Brauwner, D. L. 及びJ. E.Cutlerの、1986. Infect. Immun. 51: 327-336参照)より調製した精製ずみの接着性物質のいずれかを用いて免疫化したマウスの脾臓−誘導型B−細胞より作られる。モノクローナル抗体は、宿主細胞のリガンド構造、即ち天然に存在する糖タンパク質及び糖脂質の両方に対抗して作られるものであり、それによって細菌性の接着作用を検出するためや遮断するための試薬を開発することができ、また下記に説明したファージディスプレイライブラリーで用いるためのプローブとして機能させることもできる。本発明で用いたたくさんの糖複合体は、商業的に入手可能である。細菌/宿主標的細胞相互作用に対するmAbの特異性及び遮断効果は、上記に説明したin vitroにおける剪断アッセイシステムを用いて分析される。
実施例17
疫感作のプロトコール: Balb/cマウスは生後8−12週間のものを、ハイブリドーマ及び抗体産生のために用いる。一次免疫感作用抗原は、0.5mlのPBSに懸濁した可溶性の接着分子または糖複合体からなる10−20μgに調節し、または5×106個もしくは5×107個のホルマリン−処理した細胞は、CytRx7 TiterMaxJ#R-1に50/50の比率で乳化させる。全ての場合、皮下注入(SC)によるルートをマウスの毒性反応を回避する目的で用いる。免疫化したマウスは14日間飼育し、ELISAによって抗体応答をテストするとともに、無傷の細胞の凝集性をテストする。力価が低い場合には、同じ用量の抗原でそのマウスを追加抗原刺激し、28日間飼育してからテストを行う。この工程を、二つの抗原によってもたらされる目的とする抗体力価になるまで2週間の間隔をおいて繰り返す。
実施例18
ELISAスクリーニングプロトコール: ELISAアッセイは、Costar普遍的電子対共有型表面のアッセイプレートと、細菌性抗原と宿主の結合のための標準的なプロトコールを用いる。このシステムは2段階または3段階の成長系を用いており、そこでは接着性分子がUV架橋によって96ウェルのアッセイプレートに共有結合されている。第1段階の抗−接着性の特異的マウス血清またはハイブリドーマの上澄みの抗体を希釈し、接着性分子を結合させてそのプレートをBSAでブロックしたあとでそのプレートウェルにおいてインキュベートする。非−特異的に結合した第1段階の反応体を除去すべく洗浄した後、ぺルオキシダーゼが結合した抗−マウスの第2段階抗体をそのテストウェルに添加し、インキュベートを行ってから洗浄する。続いて基質をそのウェルに添加して、自動化ELISAプレート読み取り機を用いて連続的に読み取りを行うアッセイを進行させる。目的とする感度が得られない場合には、シグナルを増幅させるために第3段階を行う。
実施例19
ハイブリドーマ融合プロトコール: 抗−接着性ハイブリドーマをサブクローニングし、ハイブリドーマ細胞数が充分になると即座に選別する。サブクローニングは、AHAT@培地で限定的に希釈することによって96−ウェル中で行う。mAb−陽性のサブクローンをうまくELISAスクリーニングし、抗−接着性mAbを大量に製造するために、そのハイブリドーマを血清を含まない培地に適合させる。
実施例20
細菌性の接着分子及び宿主のリガンドに対して向かうモノクローナル抗体(mAb)は診断用試薬として用いることができ、またある場合には治療用薬剤として用いることができる。例えば本発明者らは、疾患の兆候が現れる前にカンジダアルビカンスでうまく感染させたマウスの血清サンプル中に、影響を及ぼす細菌の接着性分子(接着剤)が非常にゆっくりと濃縮されることを特異的mAbによって検出できることを明らかにした。さらに発明者らは、食肉のサンプル中に含まれるベロ毒素性の大腸菌またはそのベロ毒素を検出するために、その大腸菌の細胞表面及びベロ毒素接着性ドメインに対して向かうmAbの効果を証明した。
実施例21
接着性エピトープのペプチドドメインの同定
ランダムファージ−ディスプレイライブラリーを用いてマッピングするエピトープは、前核細胞または真核細胞の膜における複合の局所解剖学上部位に入り込んでいるキーとなる分子構造を調べるために用いられる。精製した糖タンパク質もしくは糖脂質に対して、または接着性−陽性の微生物に対して製造したモノクローナル抗体は、新規なベクターM13KBst上に表示されるノナペプチドライブラリー(J404)を探索するために用いられる(Burritt,J.B.及びC.W.Bond.J.Biochem.238:1-13 参照)。mAbによって結合したエピトープを運搬するファージの親和性精製法は、次の様に行った。即ち、ファージのノナペプチドディスプレイライブラリーから得られる1×1022個のファージを、4mgの抗−接着性ブロッキングmAbで複合化した1.0mIのセファロースビーズに結合させる。このビーズを4℃で16時間、緩和に反転させてファージと混合する。続いてこの混合物を5mlのプラスチックカラムバレル(Evergreen)にかけ、結合していないファージを50mlのファージ緩衝液(50mMのトリス−HC1、pH7.5、150mMのNaCl、0.5%のトウィーン20(v/v)、1mg/mlのBSA)を用いて洗浄することによって除去する。結合したファージは2.0mlの溶出用緩衝液(0.1Mのグリシン、pH2.2)を用いてカラムから溶出し、その溶出液のpHを2Mのトリズマ塩基を4滴入れることで直ちに中和する。ファージの力価(ノナペプチドライブラリー)は、標準法にしたがってプラークアッセイ法によってそれぞれのカラムの溶出物について測定する。このカラムマトリックスは、第2回目、第3回目の親和性精製法で再利用するために、10mlのPBS、pH7.0で洗浄し、続いて0.02%のアジ化ナトリウムを含む3.0mlのPBSを用いてさらに洗浄してから保存する。このカラムは次の親和性精製法で用いるときまで4℃で保存し、再利用するにあたっては、増幅させたファージと混合する前に20mlのファージ用緩衝液を用いてすすぐことによって調製する。抗体−特異性の選別法でのコントロールとしてビーズに抗体を結合させていないカラムを調製し、ファージの親和性精製法のすべてのステップをこのコントロールカラムについて行い、得られたファージのサンプルを配列決定することによって、接着性ブロッキングmAbによって認識されるペプチド配列を決定するデータを提供することができる。
in vivo で標的細胞への微生物の接着をブロックすることのできる高い親和性のペプチドは、感染性の疾患を治療したり抑制したりするための治療様薬物として用いることができる。これらのペプチドはまた、PAMに対して宿主によって産生される抗−接着性の抗体を検出するための診断用試薬として用いることもできる。
実施例22
ワクチンの調製: 生きたベクター供給システムに挿入するためのDNAの合成
接着性ペプチドを表示する親和的に精製したファージから得られるDNAは、感染したK91(E.coli)細胞から抽出し、CsCl傾斜法で精製する。接着性のペプチド−エンコードしたファージDNAの領域は、BstXIを用いて開裂させたときにベクターDNAから31−塩基対のフラグメントを除去できるような制限部位を含んでいる。次に合成DNAの挿入物を、Cwila,S.ら(Proc.Nat.Acad.Sci.87:6378-6382参照)によって記載された方法にしたがって製造する。サブユニットの接着性ドメインをエンコードするDNAを運搬するasd安定化プラスミドを構築し、Wu,S.ら(Infect.Immun.63:4933-4938)によって記載されたような減毒したネズミチフス菌株(H683)に挿入する。別法として、腸チフス菌(Salmonella typhic)または志賀赤痢菌株も接着性エピトープを発現させるために操作することができる。接着性エピトープを発現するサルモネラベクターは経口投与され、全身性のTh1及びTh2免疫応答はもちろんのこと、強力な粘液も導き出す。
宿主の免疫区画の誘導部位に抗原を供給する別の方法として、グラム−陽性の細菌の表面タンパク質の係留機構(Fischetti,V.A.1996.ASM News 62:405-410)またはアデノウイルスベクターを用いて気管内遺伝子供給法(Van Ginkel,F.W.らの、1995.Hum.Gene.Ther.6:895-903)が開発されている。
細菌の接着性分子を検出するとともに特徴付けを行い、そして複製する本発明の視覚的に完成された方法における最終的な産物は、細菌の接着分子のトポロジーを反映しているペプチドドメインを発現させたり表示したりする広い範囲で異なるサブユニットの組換え経口ワクチンである。生きたベクターの供給システムは、例えばWuらによって記載されているように、適当なペプチドエピトープを発現させることによって、宿主に入って感染させるための接着性機構を用いるどの病原性微生物に対しても構築することができる。
病原性の微生物が、細胞−細胞伝達ネットワークを覆したり、入り込んだりすることによって宿主を感染する手段として、接着性及び信号系が必要であり、それを利用していることは本発明の研究から明らかである。宿主細胞との同一性や侵略的な細菌の侵入経路、即ちアドレスの認識及び信号の変換などは、多くの細菌性接着と信号伝達系が、宿主系の機能及び分子を真似て進化した産物であることを意味する。病原性の微生物の感染経路は、宿主−炭化水素を結合するタンパク質受容体及びタンパク質を結合するタンパク質受容体の標的細胞との少なくとも二つのタイプの受容体−リガンド相互作用が関与する。宿主細胞を用いると、糖タンパク質と炭水化物リガンドとの一次の相互作用はアドレス認識の特異性をコントロールするために作用するが、受容体/リガンドペアのしっかりとした結合は形成しない。タンパク質受容体とタンパク質/ペプチドリガンドが関与する二次の相互作用は、しっかりとした結合するのを助長するとともに、宿主細胞の膜上やサイトソル中での信号伝達経路の増大を引き起こす。この原理は、認識がタンパク質(セレクチン)−炭水化物(シアリルLeX)結合によって仲介される場合に好中球が必要とされることで証明されているが、ただししっかりと結合していて、平らになっている場合はタンパク質−タンパク質(インテグリン/リガンド)結合の結果である。同様に多くの細菌や細菌性の毒素、例えば腸内出血性の大腸菌の志賀毒素様毒素などは、タンパク質受容体−炭水化物リガンド相互作用を経て内皮細胞上の分子アドレスを認識し、そして細胞内機能の破壊につながるタンパク質−タンパク質相互作用を経て信号伝達経路を開始する(St.Hilareらの、1994.Biochem.33:14452-14463参照)。病原性の細菌の最も特徴的な接着システムは、細菌と宿主細胞との間で起こるタンパク質受容体−炭水化物リガンド相互作用からなるシステムである(Mirelman,D.及びI.Ofek.1996.In.Microbial Lectins and Agglutinis,p.1-19.John Wiley and Sons.N.Y.参照)。それぞれのタイプの受容体−リガンドペアによって仲介される細菌−宿主細胞接着についての多くの重要な実施例が下記に列挙されている。
炭水化物を結合するタンパク質受容体
炎症性細胞(白血球及び内皮細胞)系の接着性分子(セクレチン)のような多くの細菌性付着分子は、レクチン様構造、即ち標的細胞上の炭水化物を認識することによって接着性の相互作用を仲介する炭水化物結合性タンパク質(CBP)として定義される(参照:Microbial Lectins and Agglutinis.1996.John Wiley及びSons,N.Y.、及びJutila,M.A.らの、1989.In:Leukocyte Adhesion,Ediited by Springer,et al Springer-Verlag,p.211-219)。これらの付着分子は化学的には糖タンパク質として定義され、無数の生物学上の作用をコントロールする。細菌のCBP受容体は炎症性細胞上のセレクチンに似ており、それは細胞−細胞相互作用において認識のための分子として機能する。BCP受容体はモノまたはオリゴサッカライドと可逆的にそして共有結合で結合するが、それは溶液中で遊離していようが細胞表面上で遊離していようが簡単な結合であると同時に複合化した結合でもある。
タンパク質を結合するタンパク質受容体
タンパク質リガンドに結合するために細菌によって用いられるタンパク質受容休の配列は、全てのクラスの病原性微生物で見いだすことができる。通常タンパク質受容体とタンパク質/ペプチド(PBP)相互作用は、宿主の標的細胞に病原体がしっかりと結合するのを促進する。このような結合は、真核細胞のアクチンネットワークにおいて別法を作り出す信号経路の活性化を導き出したり増大させたりする。タンパク質−タンパク質接着性の相関作用には二つのタイプまたは二つの細胞部位があることが明らかであり、一つ目は細菌−標的細胞の界面で起こり、二つ目は、病原体によって分泌されるタンパク質と宿主細胞のアクチンネットワーク(GTP結合性タンパク質、−Rho、Rab、Arf、Ran、Ras、Rac、Cd−42、MAPKカスケード、及びビヒクルと結合するためのt−SNARE、v−SNAREモデル)のタンパク質との相互作用によって促進される信号伝達経路である。これらのシステムの多くの場合において病原体が、宿主の接着性分子やそのリガンドを擬態したり侵害したりすることが下記の特定の実施例で示されているように記録された。
PBPクラスの受容体を発現するヒトの細菌性病原体
細胞−細胞相互作用及び細胞−細胞外マトリックス相互作用で機能するインテグリンファミリー及びそれらのタンパク質/ペプチドリガンドにおいて見られる宿主の接着性分子は、インテグリンまたはそれらのタンパク質リガンドに細菌性同一性があるために破壊されるということがわかった。宿主では、β1インテグリン(VLAファミリー)は細胞外マトリックス成分であるフィブロネクチン、フィブリノーゲン、ラミニン及びコラーゲンに結合し、そしてそれらは多くの非−出血性の細胞型上及び白血球型上で発現する。β2サブファミリーのものは、それらの発現が白血球に限定されるため、白血球インテグリンともよく言われる。LFA−1、Mac−1及びgp150.95β2インテグリンは、骨髄細胞が他の細胞や、補体及びクロッティングカスケードを活性化する際に不溶化されてしまうリガンドに接着する際に重要である。インテグリンの構造的なドメインは、配列Arg−Gly−Asp(RGD)、全てのインテグリンではないが数個のインテグリンについてのリガンド認識モチーフを含むペプチドに架橋することによって結合するリガンドと関連していた。宿主のインテグリンファミリーと免疫グロブリンのスーパーファミリーからなる接着性分子に関する分子上及び機能上の擬態が観察されている(Hoepelman,A.I.M.及びE.I.Tuomanen.1992..Infect.Immunity.60:1729-1733 参照)。宿主の細胞外マトリックスタンパク質の擬態を開発した他の病原体は、それらの細胞表面上にRGD配列を表示し、その結果容易にインテグリンに結合する。
細胞外タンパク質−タンパク質相互作用
病原性微生物は、真核細胞の細胞骨格を調節する際に関与する分子を機能的に擬態する一つの配列のタンパク質分子を必要としている。これらのいわゆる有害なタンパク質は、例えば宿主細胞のアクチンネットワークの機能を導く少量のグアノシントリホスフェート(GTP)−結合性タンパク質(−Rho、Ras、Rac、Cdc42など)を含む信号発生カスケードで妨害する。有害なタンパク質はGTP−結合性タンパク質に非常に特異的な様式で結合するらしく、微生物のためのアクチンネットワークの配列換えを促進する。
他のタンパク質−タンパク質相互作用
免疫性及び炎症を調節するためには、間違いなく何百もの異なるサイトカインと何ダースものサイトカイン−活性化二次−メッセンジャ−系がある。サイトカインと細胞との相互作用は主としてタンパク質−タンパク質/ペプチド接着の成り行きであり、またその相互作用の多くは細菌の相同性によって覆されたり、あるいは穿刺されたりする。
サイトカインとして初めは分類されたケモカインは、それらの白血球−化学誘引物質活性が最も知られている小さな前−炎症性のペプチドである。それらのリガンドに似た受容体は、構造的に及び機能的に関連するタンパク質からなる一つのファミリーを形成する。それらは、アミノ酸配列の相同性で定義することのできるヘプタヘリカル、ロドプシン−様、G−タンパク質−カップルさせた受容体からなるスーパーファミリーの一員である。白血球ケモカイン、IL−8、及びマクロファージ炎症性タンパク質1α(MIP−1α)/RANTES受容体に対するタイプA及びB受容体は、配列が関連していて、二つのヘルペスウイルス産物に結合するケモカインである。
発明者らは、経口投与または鼻腔内投与を行うようにデザインされた組換えサブユニットワクチンを開発した。経口のワクチンは、Wuらによって記載された方法にしたがって製造する。なおこの方法では、微生物の表面にペプチドエピトープを表示したりまたは発現させたりする生きたベクター(ネズミチフス菌)系を用いることによって、可能性のある粘膜及び全身性の免疫応答を産生する。また、本発明者らのうちの一人によって同時に開発されたもう一つのベクタ一系は、重要なエピトープを呼吸器管上の粘膜免疫区画に供給するためのアデリオロウイルスベクター系を用いている。同様に他のウイルス、ファージ、細菌または重合性のべクターを用いることかできる。
哺乳動物のセクレチンはワクチンとして、またはワクチンに入れて用いないが、それはそれらのセクレチンが宿主起源の単離物であり、したがって非−免疫原性のためである。セクレチンと同様の様式で炭水化物リガンドを結合する細菌の接着性部位のペプチドドメインのみ、またはその機能的なアナログが、ワクチン調製物として役に立つ。ワクチン配合剤に組み入れた細菌のペプチドドメインは、充分な免疫原性を持っていて免疫応答を引き起こすことができる。
さらに本発明のワクチン及びペプチド化合物は、単位用量づつ投与できる形態、例えば錠剤、カプセル剤、丸剤、粉末剤、顆粒剤、坐剤、滅菌性の非経口溶液剤または懸濁剤、滅菌性の非経口性でない溶液剤または懸濁剤、経口の溶液剤または懸濁剤、水中油型または油中水型の乳濁剤などの形態で、適切な場合には適当な量の活性な成分を含ませてヒト及び動物に全身性投与する際の薬学上組成物において有用である。
固体状または液体状のいずれかで単位用量づつ投与する形態によって経口投与するためには、本発明のワクチン及びペプチドを用いて調製することができる。ワクチン及びペプチドは、活性な成分をキャリアまたはビヒクルとともに入れてなる薬学上組成物で有用であり、その組成物中、約1−20重量%、好ましくは約5−15重量%で含まれている。
液体状または固体状のいずれかからなる単位用量剤形は、経口投与のために容易に作ることができる。例えばこのワクチンを、リン酸二カルシウム、マグネシウムアルミニウムケイ酸塩、ステアリン酸マグネシウム、硫酸カルシウム、スターチ、タルク、ラクトース、アカシア、メチルセルロース、または薬学上の賦形剤もしくはキャリアとして機能的に同じ物質のなどの便利な成分と共に混合してもよい。持続的に放出する剤形も任意で用いることができる。カプセル剤は、この化合物を不活性な薬学上の希釈剤とともに混合し、その混合物を適当な大きさの硬いゼラチンカプセル剤に入れることによって調剤することができる。ソフトカプセルが望ましいのであれば、この化合物を受容可能な植物性オイル、軽油、または他の不活性なオイルとともにスラリー状にしたものを機械によってゼラチンカプセルに入れてカプセル化してもよい。
懸濁剤、シロップ剤及びエリキシル剤は、液体状の単位用量形態で経口投与する際に役立つことができる。オイルを含む液状製剤は、オイル可溶性の形態のものに対して有用であろう。コーンオイル、ピーナッツオイルまたはサフラワーオイルのような植物性オイルは、例えば風味料、甘味料及び保存料と一緒にして受容可能な液状調製剤を製造する。シロップ剤を液状の単位用量製剤にするため、界面活性剤を水に添加してもよい。水−アルコール性の薬学的調製剤は、例えば砂糖、サッカライドまたは生物の甘味料のような受容可能な甘味料や風味料を添加してエリキシル剤の形態にして用いることもできる。非経口投与及び坐剤投与のための薬学的組成物も、この技術における標準的な手法を用いて入手することが可能である。
上記のペプチドまたはワクチン、及び他の薬物は、単独で容器に入れてもよいし、または薬学的なキャリアやアジュバントと組み合わせた形態にしてもよい。本発明の目的で受容可能な薬学的なキャリアは、薬物や宿主、それに薬物供給装置を構成する材料に対して悪い影響を与えないようなこの技術で既知のキャリアである。好ましい薬学的キャリアには、滅菌水、食塩水、デキストロース、水か食塩水に入れたデキストロース、ひまし油1モルあたり約30−約35モルの酸化エチレンを組み合わせたひまし油と酸化エチレンの縮合生成物、水性酸、低級のアルカノール、コーンオイル、ピーナッツオイル、胡麻油などの油、例えば脂肪酸のモノ−グリセライドやジ−グリセライド、または例えばレシチンなどのホスファタイドのような乳化剤とともに入れた油、グリコール、ポリアルキレングリコール、例えばカルボキシメチルセルロースのナトリウム塩、アルギン酸ナトリウム、ポリ(ビニルピロリドン)などの懸濁剤が単独で、または例えばレシチン、ポリオキシエチレンステアレートなどの適当な分散剤とともに存在する水性媒体が含まれる。またこのキャリアは、保存料、安定化剤、湿潤剤、乳化剤などのアジュバントを、本発明の浸透性促進剤とともに含んでいてもよい。ワクチンの供給系には、ファージ(例えばM13)、生きたベクター、サルモネラ菌種、赤痢菌種、アデノウイルス、リポソーム、カウピーモザイクウイルス(cowpea mosanic virus)、アルギネートゲル、ペプチド複合体、適当なアジュバント系及び糖複合体も含まれる。これらの供給系はすべて、それらの表面に発現するタンパク質または活性な分子を持っている。
哺乳動物に対する有効量は、治療を行うべき患者の年齢、体重、活動レベルや症状などのファクターによって変わるであろう。通常は本発明にかかる化合物の有効ワクチン用量は、投与した場合には約10−500mgである。ワクチン接種は、Remington's Pharmaceutical Sciences,18th Ed.,Wiley Publicatlons,1990 における前述したプロトコールと同じでなくてはならない。なお、この文献はその全体が参照文献としてこの明細書に組み入れられる。
参照文献
1. Tuomanen,E. 1992. Subversion of leukocyte adhesion systems by respiratory pathogens. ASM News 59:292-296.
2. Falkow,S.,1991,Bacterial entry into eukaryotic cells.Cell 65:1099-1102.
3. Ishibashi,Y.,Claus,S.,and D.A.Relman,1994. Bordetella pertuss isfilamentous hemagglutinin interacts with a leukocyte signal transduction complex and stimulates bacterial adherence to monocyte CR3 (CD11b/CD18). J. Exp. Med. 180:1225-1233.
4. Jutila, M.A.,Lewinsohn,D.M.Berg., E.L.and E.C.Butcher.1989. Homing receptors in lymphocyte,monocyte and neutrophil interaction with endotheliun. In: Leukocyte Adhesion,edited by Springer,et al. New York:Springer-Verlag,p.211-219.
5. Lasky,L.A. 1992. Selectins: Interpreters of cell-specific carbohydrate information during inflammation. Science. 258:964-969.
6. Jutila, M.A. 1994. Selectins in leukocyte extravasation:function of a common epitope on L-and E-selectin. Adv. Pharmacol.25:235-262.
7. Smith,C.W. 1993. Endothelial adhesion molecules and their role in inflammation. Can. J. Physiol. Pharmacol. 71:76-87.
8. Bevilacqua,M..P. and R.M. Nelson. 1993,Selectins. J.Clin. Invest. 91:379-387.
9. Wolber,F.,R.Craig,O.Abassi,J.Ballew,R.Lobb and L.Stoolman,1993. VLA-4mediates lymphocyte bindig to endothelium under shear. FASEB 7:A3704. (Abstract).
10. Berg,E.L.,L.M.McEvoy,C.Berlin,R.F.Bargatze and E.C.Butcher. 1993. L-selectin mediated lymphocyte rolling on MAdCAM-1. Nature 366:695-698. venules. J. Exp. Med. 178:367-372.
11. Jutila,M.. 1994. Selectins in leukocyte extravasation:function of a common epitope on L−and E-selectin. Adv. Pharmacol.25:235-262.
12. Lawrence,M.B.and T.A.springer. 1993. Neutrophil s roll on E-selectin. J. Immunol. 151:6338-6346.
13. Smith, C.W. 1993. Endothelial adhesion molecules and their role in inflammation. Can.J. Physiol. Pharmacol.71:76-87.
14. Lawrence, M.B.and T.A.Springer. 1991. Leukocytes roll on a selectin at physiologic flow rates:Distinction from and prerequisite for adhesion throug hintegrins. Cell 65:859-873.
15. Butcher,E.C. 1986. The regulation of lymphocyte traffice.Curr. Top. Microbiol. Immunol. 128:85.
16. Ley, K.P.Gaehtgens, C.Fennie,M.S.Singer, L.A.Lasky and S.D.Rosen,1991. Lectin−like adhesion molecule-1 mediates leukocyte rolling in mesenteric venules in vivo. Blood 77:2552-2555.
17. von Andrian,U.H.,J.D.Chambers,E.L.Berg,S.A.Michie,D.A.Brown, D.Karolak,L.Ramezani,E.M.Berge, K.E.Arfors and E.C.Butcher. 1993. L-selectin mediates neutrophil rolling n inflamed venules through sialyl Lewis-dependent and independent recognition pathways, Blood 82:182-191.
18. Abbassi,O., T.K.Kishomoto, C.L.Lane, L.V.Mc lntyre and C.W.Smith,1993. Endothelial-leukocyte adhesion molecule-1 supports neutrophil rolling in vitro under conditions of flow.Submitted.
19. Bargatze,R.,S.Kurk,G.Watts,T.K.Kishimoto,C.A.Speer,and M.A.Jutila. 1994. In vivo and in vitro functional examination of a conserved epitope of L-and E-selectin crucial for leukocyte-endothelial cell interactions. J. Immunol., 152:5814.
20. Ahuja,S.,J.L.Gao and P.M.Murphy,1994. Chemokine receptors and molecular mimicry. Immunol. Today. 15:281-287
21. St.Hilaire,P.M.,M.K.Boyd,and E.J.Toone. 1994. Interaction of the Shiga-like toxin Type 1 B-subunit with its carbohydrate receptor. Biochem. 33:14452-14463.
22. Keusch, G.T., A.Donohue-Rolfe,and M.Jacewicz. 1986.Microbial lectins and agglutinins: Properties and biological activity. p.271-295. John Wiley and sons,NY.
23. Cossar, P.,P.Boquet, S.Normark,and R.Rappuoli. 1996.Cellular Microbiology Emerging. Science 271:315-316.
24. Baringa,M. 1996. Ashared strategy for virulence. Science 272:1261-1263.
25. Ishibashi,U.,Claus,S.,and Re1man,D.A. 1994. Bortella pertussis filamentous hemagglutinin interacts with a leukocyte signal transduction complex and Stimulates bacterial adherence to monocyte CR3(CD11b/CD18). J. Exp. Med. 180(4):1225.
26. Kimura, A., Mountzouros, K.T/, Relman, D.A., Falkow,s.,and Cowel1,J.L. 1990. Bordetella pertussis filamentous hemagglutinin:evalution as a protective autigen and colonizing factor in a mouse respiratory infection model. Infect. Immun.58(1):7.
27. Falanga,P.B.,and Butcher,E.C. 1991. Late treatment with anti-LFA-1(CD11a) antibody prevents cerebral malaria in a mouse model. Eur. J. Immunol. 21:2259.
28. Ockenhouse,C.F.,et al. 1992. Human vascular endothelial cell adhesion receptors for Plasmodium falciparum−infected erythrocytes:Roles for endothelial leukocytea dhesion molecule 1 and vascular cell adhesion molecule 1. J. Exp. Med. 176:1183.
29. Cutler, J.E.,D.L.Brawner,K.C.Hazen, and M.A.Jutila.1990. Characteristics of Candida albicans adherence to mouce tissue. Infect. Immun. 58:1902-1908.
30. Klotz,S.A.,and Smith,R.L. 1991. A fibernectin receptor on Candida albicans mediates adherence of the fungus to extracellular matrix. JID. 163:604.
31. Relman,D.,E.Tuomanen,S.Falkow,D.T.Golenbock,K.Saukonen,and S.D.Wright,1990. Recognition of a bacterial adhesin by an eukaryotic integrin:CR3 on human macrophages binds filamentous hemagglutinin of Bordetella lapertussis. Cell 61:1375-1382.
32. Saukonen,K.,W.N.Burnette,V.Mar,H.R. Masure,and E.Tuomanen.1992. Pertussis toxin has eukaryotic-like carbohydrate recognition domain. Proc. Nmatl. Acad. Sci. 89:118-122.
33. van't Wout,J.W.N.Burnette,V. Mar,H.Sato,S.D.Wright and E.Tuomanen. 1992. Cooperative microbial adhesins: the Boligomer of pertussis toxin triggers enhanced FHA-mediated entry of Bordetella pertussis into human macrophages. Infect.Immun. 60:3303-3308.
34. Whittan,T.S.,I.K.Wachsmuth,and R.A.Wilson. 1988. Genetic evidence of conal descent of Escherichia coli 0157: H7 associated with hemorrhagic colitis and hemolytic uremic syndrome. J.Infect. Dis. 157:1124-1133.
35. Karmalim,M.A.,M.Petric,C.Lim,and J.Hockin. 1985.The associated between idiopathic hemolytic uremic syndrome and infection by vertoxin-producing Escherichia coli. J.Infect. Dis. 151:775-782.
36. Sherman,P.,R.Soni,M.Petric,and M.karmali. 1987. Surface properties of the vero cytotoxin-producing Escherichia coli 0157:H7. Infect. Immun. 55:1825-1829.
37. Karch,H.J. Heesemann, R.Laufs, A.D.O'Brien, C.O.Tacket,and MM.Levine. 1987. A plasmid of enterohemorrhagic Escherichia coli 0157:H7 is required for expression of a new fimbrial antigen and for adhesion to epithelial cells. Infect. Immun. 55:455-461.
38. Dytoc.,M.T.,A.Ismaili,D.J.Philpott,R.Soni,J.L.Brunton,and P.M.Sherman. 1994. Distinct binding properties ofe aeA-negative veroctytoxin producing Escherichia coli of serotype 0113:H21. Infect. Immun. 62: 3494-3505.
39. Dytoc,M.B.Gold,M.Louie,M. Huesca, L.Fedorko, S.Crow,C.Lingwood, J.BruntonandP.Sherman. 1993. Comparison of Helicobacter Pylori and attaching-effacing Escherichia coli adhesion to eukaryotic cells in vitro. Infect. Immun. 61:448-456.
40. Louie, M., J.D.Azavedo, R.Clarke, A.Borczyk,H.Lior,M.Richter, and J.Brunton. 1994. Sequenceh eterogeneity of the eae gene and detection of verotoxin-producing Escherichia coli using a serotype-specific primners. Epidemiol. Infect. 112:449-461.
41. Donnenberg, M.S.and J.B.Kaper. 1992. Enteropathogenic Eshcerichiacoli. Infect. Immun. 60:3953-3961.
42. Donnenberg,M.S.,J.A.Nataro and J.B.Kaper. 1992. A plasmid -encoded type IV fimbrial gene of enteropathogenic. Escherichia coil associated with localized adherence. Mol. Microbio. 6:3427-3437.
43. Yu,J.,and J.B.Kaper. 1992. Cloning and characterization of the eae gene of enterohemorrhagic Escherichia coli 0157:H7.Mol. Microbiol. 6:411−417.
44. TranVanZNheiu,G.,andR.R.Isberg. 1991.TheYersinia pseudotub erculosis invasin protein and human fibronectin bind to mutually exclusive sites on the alpha 5 betal integrin receptor.J. Biol. Chem. 266:24367-24375.
45. Newell,D.G. 1991. Virulence factors of Helicobactor pylori. Scand. J. Gastroenterol. Suppl. 187:31-38・
46. Boren,T.S.Normark and P.Falk,1994. Helicobactor pylori:molecular basis for host recognition and bacterial adherence.Trends Microbiol. 2:221-228.
47. Lindberg,AA. et al.,1987. Indentification of the carbohydrate receptor for Shiga toxin produced by Shigella dysenteria type 1. Biochem. 262: 1779-1785.
48. Finne,J. 1985. Polysialic acid a glycoprotein carbohydrate involved in neural adhesion and bacterial meningitis. TIBS.
49. Tjia,K.F.,J.P.Putten,E.Pels,and H.C.Zanen. The interaction between Neisseria gonorrhoeae and the human cornea in organ culture. Graefes Arch. Clin. Exp. Ophthalmol.1988. 226:341-345.
50. Weel,J.F.,C.T.Hopman and J.P.van Putten. In situ expression of Neisseria gonorrhoeae opacity proteins in infected epithelial cells;apparent role of Opa proteins in celluar invasion. J.Exp. Med. 1991. 174:705-715.
51. Soteriadou,K.P.,M.S.Remoundos,M.C.Katsikas,A.K.Tzinia,V.Tsikaris, C. Sakarellos, S.J.Tzartos. 1992. The Ser-arg-tyr-Asp region of the major surface glycoprotein of Leish mimics the arg-gly-asp-ser cell attachment region of fibronectin.J. Biol. Chem. 267:1398-13985.
52. Patti,J.M.,B.L.Allen,M.J.McGavin and M.Hook. 1994.MSCRAMM-Mediated Adherence of Microorganisms to Host Tissues.Annu. Rev. Micro. 48:585-616.
53. Kaplan,B.S.,T.G.C1eary and T.G.Obrig. 1990. Recent advances in understanding the pathogenesis of the hemolytic uremicsyndromes. Pediatr. Nephrol. 4:276-283.
54. Wu,S.,D.W.Pascual, J.L.VanCott, J.R.McGhee,D.R.Maneval,Jr., M.M.Levine, a M.Hone. 1995. Immune responses to novel Escherichia coli and Salmonella typhimuriu vectors that express colonization factor antigen I (CFA/1) of enterotoxigenic E.coli in the absence of the CFA/1 positive regulator cfaR. Infect.Immunity. 63:4933-4938.
55. Pascual. et al. 1996. Mucosal Immunity: molecular and cellular aspects of immune protection to enteric infections in: Enteric infections and immune responses. Eds. Paradise,Bendinelli and Friedman. p. 15-35. Plenum Press, NY. 56.Briggs, J.B.,Y.Oda, J.H.Gilbert, M.E.Schaefer,and B.A.Macher.19
95. Peptides inhibit selectin-mediated adhesion in vitro and neutrophil influx into inflammatory sites in vivo. Glycobiol.5(6):583-588.
57. Spevak,W.,C.Foxall,D.H.Charych,F.Dasgupta,and J.O.Nagy. 1996. Carbohydrates in acid icmultivalent assembly:Nanomolar P-selectin inhibitors. J. Med. Chem. 39: 1018-
58. Burritt,J. B.,and C.W.Bond. 1996.Filamentous phage display of oligopeptide libraries. A Biochem. 238:1-13.
上記の説明及び実施例の目的は本発明のいくつかの態様を例示するためのものであって、何らかの限定を意味しているのではない。本発明の組成物及び方法に、本発明の精神及び範囲を逸脱することなく修飾や変形を加えることができることは当業者には明らかであろう。この明細書で引用したすべての特許文献及び刊行物は、その全体が参照文献としてこの明細書に組み入れられる。
本発明は、微生物感染症を治療するための治療用ペプチド類及び炭水化物類、ワクチン類及ひ診断剤に関し、また接着阻止技術を特徴とする。
背景
感染症において、病原体は、体内で移動する白血球に類似の仕方で一方の位置から他方の位置に通行又は移行する。白血球と微生物との通行の相同、最も顕著には、分子のアドレス認識、シグナル伝達、及び内皮及び上皮を通過することは、多くの微生物の接着及び信号系が宿主タンパク質及び炭水化物部分の機能的及び分子的擬態の進化産物であることを意味している。細胞生物学及び微生物病原論のこの近似現象は、哺乳動物細胞の通行の各系に対し、ネットワークと親密に懇意な病原体が存在することを予測している。
宿主を感染させる病原体の能力は、もはや単に細胞死滅させる及び/又は宿主の免疫機序を圧倒する侵入又は毒素生産特性によって単に定義すべきではない。それよりも、最近の研究(1、2、3、27、20、44、52)は、微生物の病原性は、病原体の成長及び増殖に好ましい細胞及び組織環境を見出す手段として宿主の細胞伝達ネットワークを利己的に利用するそれらの能力によってより正確に定義することができることを示唆している。したがって、病原体は、宿主の複雑な化学及び細胞環境を利己的に利用しながら宿主に対する損傷をできるだけ少なくする。機能的な言葉で、組織指向性の基礎となる病原体の選り抜きの組織環境への移動は、特定の分子アドレスを持っている宿主細胞又は細胞外マトリックスを病原体が認識した結果と見ることができる。他の微生物接着の因子が、機能して宿主細胞に合図して、細胞又は周囲の支質への病原体の侵入又は通行を調和する。他の宿主−寄生体相互作用において、病原体は、病原体の成長及び増殖を援護して宿主の代謝機構を先取又は向け直す細胞内信号を展開させる。これらの目覚ましい行為は、宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞の接着分子を包含する細胞−細胞伝達ネットワークを病原体が使用することによって達成されると思われる。
米国特許出願番号第08/247,972号(PCT/US95/06832に関連)及ひ第08/483,558号は、リポソーム担体中の単離ホスホマンノタンパク質(phosphomannoprotein)細胞壁複合体である、カンジダ・アルビカンス(Candida albicans)の接着分子を含有するカンジダ症の治療用ワクチンを開示している。
この従来技術は、病原体及び感染因子が、宿主細胞自体の機構(認識及び信号系)を使用して、宿主細胞を模倣し、また微生物が宿主内を通行しかつ比較的容易に細胞及び組織に入ることを可能とすることを認識していなかった。本発明者等は、病原体が宿主細胞万能抗原(付着又は接着分子)を使用して付着及び増殖することを見出した。本発明は、従来技術における困難に打ち勝って、病原性感染症の治療用の万能型ワクチンを開発する。
発明の開示
本発明の目的は、接着タンパク質、脂質分子又は炭水化物分子等の標的宿主細胞分子のアドレスを模倣する微生物付着分子から成るワクチンを提供することにある。
本発明は、宿主細胞上の分子アドレスに結合することができる1種又はそれ以上の付着分子又はその断片から成り、その結合によって、1つ又はそれ以上の信号伝達路を誘発し、かつ選択された病原体及び/又はその毒素が宿主組織を通行することを可能とすることができる予防及び治療ワクチンを提供する。
本発明の他の目的は、白血球、内皮細胞及び上皮細胞から成る群から選択される細胞の宿主細胞接着タンパク質又は炭水化物分子を模倣する微生物付着分子から成るワクチンを提供することにある。本発明は、また微生物付着分子から成るワクチンも規定する。別の実施態様において、本発明は、宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される細胞の宿主細胞(接着)タンパク質又は炭水化物分子を模倣する微生物付着分子に特異的なモノクローン抗体から成る診断アッセイを提供する。 有利なことに、本発明は、病原体の接着分子を模倣し、かつ宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される細胞のレセプター分子と相互作用する分子から成る治療用ペプチドを提供する。治療用ペプチド分子は、宿主接着分子のレセプター(リガンド)と特異的に反応してもよい。逆に言えば、本発明は、宿主細胞の接着分子を模倣し、かつ病原体の接着分子と相互作用する(を阻害する)分子から成る治療用ペプチド又は炭水化物を提供する。
本発明は、病原体に対し免疫を発現するためのワクチンを得る方法であって、
(a) 宿主細胞に発現した領域を模倣する病原体の付着分子(PAM)を単離し;
(b) 前記単離した付着分子の少なくとも1つの領域に対するモノクローン抗体(mAbs)を発現し;
(c) 前記mAbsによって結合されたエピトープの精製を行い;
(d) 病原体の付着分子のトポロジーを反映するペプチドドメインから成るワクチンを得るの各工程から成ることを特徴とする方法を提供する。
本発明の上記及び他の目的は、本発明の好ましい実施態様だけを本発明を実施する最良の形態を単に例示するものとして示し、かつ説明する以下の詳細な説明及び図面から、当業者に容易に明らかになるであろう。容易に認識されるように、本発明は、本発明の精神及び範囲から逸脱することなく当業界の技術の範囲で改変することができる。
図面の簡単な説明
図1は、宿主/接着系の概略図を示す。1(a)は、付着分子を有する好中球宿主細胞を示し;1(b)は、付着分子を有するリンパ球宿主細胞を示し;1(c)は、付着分子を有する単核球宿主細胞を示し;1(d)は、付着分子を有する内皮宿主細胞を示す。
図2は、原形試験管内(in vitro)血管ずれ流動系の概略図を示す。生体内(in vivo)鏡検を用いる生体内ずれモデルも本発明によって開発され、無処理動物の細静脈に見られる生理学的剪断力下での細胞相互作用を検討した。
発明の説明
本発明は、微生物感染症を治療するための治療用ペプチド類及び炭水化物類、ワクチン類及び診断剤に関する。一般に、本発明のワクチンは、微生物付着分子から成る。より具体的に、本発明のワクチン類は、標的宿主細胞接着タンパク質又は炭水化物分子を模倣する微生物付着分子又はその断片から成る。
好ましい実施態様において、宿主細胞接着タンパク質又は炭水化物分子を模倣する微生物付着分子は、白血球、内皮細胞及ひ上皮細胞から成る群から選択される宿主細胞を模倣する。
付着分子は、セレクチンに実質的かつ機能的に類似した分子のようなセレクチンに似ていてもよい。好ましい実施態様において、セレクチン分子は、E、L及びPセレクチンに類似したものから選択される。
本発明のワクチンの別の実施態様において、付着分子は、インテグリン、好ましくはインテグリン類のVLA、Leucam及び細胞接着ファミリーに似ている。さらに、インテグリン分子に実質的かつ機能的に類似の分子を使用してもよく、VLAI−6、MAC−1、LFAI−3、CD41a、CD49及びCD51インテグリン類から選択されるインテグリン分子がより好ましい。
さらに別の実施態様において、付着分子は、免疫グロブリンスーパーファミリーの一員、好ましくは免疫グロブリンスーパーファミリーのICAMI−3、VCAM、NCAM及びPECAMに似ている。免疫グロブリンスーパーファミリー分子に実質的かつ機能的に類似の分子も、本発明を実施する際に使用することかできる。
さらに別の実施態様に関し、付着分子は、サイトカイン又はケモカインファミリーの一員に似ている。
あるいはまた、本発明のワクチンによれば、付着レセプター分子は、ムチン分子あるいは原核又は真核的接着タンパク質に似ていてもよい。
本発明のワクチンにおいて、病原体によって模倣される宿主細胞接着タンパク質又は炭水化物分子は、白血球、内皮細胞、上皮細胞及び神経系の細胞から成る群から選択される細胞のものである。好ましい実施態様において、内皮細胞は、ICAM−1及びVCAM−1正腸内皮細胞、MAdCAM−1正腸内皮細胞及びPNAd−1正抹消リンパ節内皮細胞等のサイトカイン活性内皮細胞から選択される。標的宿主細胞は、肺胞マクロファージを含む鼻咽頭及び肺胞の細胞から成る群から選択される呼吸器路細胞でありうる。
ワクチンに微生物付着分子を供給する微生物は、百日咳菌(Bordetella pertussis)、中央アフリカ産げっ歯類マラリア病原虫(Plasmodium berghei)、熱帯熱マラリア病原虫(Plasmodium falciparum)、カンジダアルビカンス(Candida albicans)、赤痢菌種(Shigella sp.)、赤痢アメーバ(Entamoeba histolytica)、コレラ菌(Vibrio cholerae)、サルモネラ種(Salmonella sp.)及び大腸菌(E .coli)0157:H7を含む微生物から選択することかできる。あるいはまた、微生物は、マイコバクテリア、レジュネラ(Legionella)、葡萄球菌、連鎖球菌、ヒストプラスマ及び肺炎球菌からも選択することができる。微生物は、偽結核エルジニア菌(Yersinia pseudotuberculosis)又はエルジニアエンテロコリチカ(Yersinia enterocolitica)でありうる。
微生物が百日咳菌である場合、付着分子は、百日咳毒素及び糸状血球凝集素(FHA)又は機能的に同等の分子であるのが好ましい。百日咳宿主細胞認識分子は、タンパク質サブユニットS2及びS3によってコードされる。微生物が、ヘリコバクターピロリ(Helicobacter pylori)である場合、付着分子は、フコース化された血液型O型抗原で相互作用することによって胃上皮細胞に接着するのが好ましい。
あるいはまた、微生物は、腟トリコモナス(Trichomonas vaginalis)、三鞭毛トリコモナス(Tritrichomonas foetus)、クリプトスポリジウム(Crytosporidium)、ジアルジア(Giardia)及びエントアメーバ(Entamoeba)から選択することもできる。付着分子は、リーシュマニア(Leishmania)のgp63でありうる。
かくして、本発明のワクチンは、とりわけ、ヒストプラスマ症、肺ブラストミセス症、ノカルジア症、クリプトコックス症、気管支肺カンジダ症、肺アスペルギルス症、結核症、感染症及び在郷軍人病(Legionnaires disease)から選択される微生物感染症の治療用である。
本発明のワクチンにおいて、接着分子は、炎症内皮上のリガンドを認識するLFA−1、Mac−1及びP150.954から成る群から選択されるCD18接着を模倣するのか好ましい。接着は、プラスミド遺伝子によって発現された、又はコレラ菌、淋菌(Neisseria gonorrhoeae)、髄膜炎菌(Neisseria menignitidis)、緑膿菌(Pseudomonas aerginosa)及び大腸菌(Escherichia coli)から成る群から選択される菌株からの束形成ピリ繊毛に関連した19kDaのEAF繊毛束形成ピリ繊毛接着である。あるいはまた、腸内微生物の接着は、上皮細胞形質膜に接着する外膜タンパク質染色体コード94kDaインチミンでありうる。本発明の他の実施態様において、接着レセプターは、好ましくはN−アセチルノイラミン酸残基の鎖状重合体を有するポリシアル酸である。本発明のワクチンのポリシアル酸は、髄膜炎菌のB群多糖類及び大腸菌のK1多糖類から選択することかできる。
本明細書で使用する用語粘着(adhesin)分子とは、微生物又は病原体付着分子だけを言い、また用語接着(adhesion)分子とは、宿主及び病原体付着分子の両方を言う。
診断アッセイ
本発明の診断アッセイは、宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される細胞の宿主細胞(接着)タンパク質又は炭水化物分子を模倣する微生物付着分子に特異的なモノクローン抗体から成る。
モノクローン抗体は、興味のある病原体に接着する。モノクローン抗体は、そっくりそのまま参照することによって本明細書に組み入れられるサンブルーク(Sambrook)及びマニアチス(Maniatis)等、Molecular Cloning: A Laboratory Manual(1989)、コールド・スプリング・ハーバー出版に記載されている手順に従って、興味のある接着又は付着分子に対して作成することかできる。
呼吸している微生物の検知、同定及び計数のための検定は、
a) 微生物試料を採集装置に通して細胞を捕獲し;
b) 採集装置に呼吸している細胞の検出に特異的な蛍光色素染料を加え、そして染料を保温させる;
c) 採集した細胞を微生物試料中に存在する興味のある微生物と反応する反応性蛍光抗体で処理し;
d) 前記採集装置を、適切な光学系を使用して蛍光色素染料及び蛍光抗体を励起して蛍光を発する蛍光顕微鏡法によって調べるために据えつけ;及び
e) 前記呼吸している標的微生物細胞の量の尺度として蛍光を定量するの各工程から成る。呼吸している微生物の検出に特異的な蛍光色素染料は、呼吸している微生物によって吸収されて、その微生物のチトクローム系によって不溶性ホルマザン結晶に転化されるのが好ましい。呼吸している微生物の検出に特異的な蛍光色素染料は、テトラゾリウム化合物であるのがより好ましい。テトラゾリウム化合物は、5−シアノ−2,3−ジトリルテトラゾリウムクロライド(CTC)であるのが最も好ましい。
別の実施態様において、本発明は、
a) 標的バクテリアに特異的に結合する1種又はそれ以上の抗体を含む免疫磁気(immunomagnetic)ビーズを試験試料液と混合し;
b) 前記試料液を1時間までの間ビーズと相互に作用させ;
c) この試料を、標的バクテリアが付着した磁気ビーズを試料液から分離させる磁気分離器中に入れ;
d) 試料液から液を吸引して、バクテリアが付着したビーズを残し;
e) ゆるく結合したバクテリア及び他の粒子を試料液から除去する溶液でビーズを洗浄し;
f) バクテリアか付着したビーズを、呼吸しているバクテリアの検出に特異的な蛍光色素染料と混合し;
g) ビーズ上のバクテリアを蛍光染色又は特異的な蛍光接合抗体で処理し
h) 前記試料を、適切な光学フィルター系を使用して蛍光色素染料及び蛍光色素標識抗体を励起するエピ蛍光顕微鏡法によって調べるために据えつけ;及び
i) 前記呼吸している標的バクテリアを蛍光させて定量するの各工程から成る呼吸している標的バクテリアの検知、同定及び計数のための方法を規定している。
この検定は、そのままそっくり参照することによって本明細書に組み入れられる、1994年5月18日に出願した米国特許出願番号第08/245,262号又はPCT/US95/05971の開示に従って免疫磁気ビーズを用いて実施することができる。さらに、本出願に対応する暫定米国特許出願番号第60/007,477号をそのままそっくり参照することによって組み入れる。
治療用ペプチド
本発明は、病原体の接着分子を模倣し、かつ宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される宿主細胞のレセプター分子と相互作用する分子から成る治療用ペプチドも包含する。
好ましい実施態様において、治療用ペプチド分子は、宿主接着分子のセレクチンファミリーのレセプター(リガンド)と特異的に反応する。治療用ペプチド分子は、宿主接着分子の免疫グロブリンスーパーファミリーのレセプターと反応するのか好ましい。あるいはまた、ペプチド分子は、宿主接着分子のインテグリンファミリーのレセプターと反応し、又は宿主細胞接着分子を模倣し、かつ病原体の接着分子と相互作用する。
あるいはまた、ペプチドは、宿主接着分子の細胞質遺伝子又はケモカインファミリーのレセプターと反応し、又は宿主接着分子を模倣し、かつ病原体の接着分子と相互作用する。
本発明者等は、脊椎動物の自然に産出する内因性ペプチド抗生物質が、ウイルス、バクテリア、真菌及び寄生虫性の感染症に対する効果的な抑止剤として作用することを見出した。遺伝子コードペプチド抗生物質は、哺乳動物、鳥類、両性類、昆虫及び植物における宿主防御の偏在する成分である。それらの新規合成(de novo synthesis)は貯蔵部位からの放出を急速に誘発して、それらを微生物侵入に対する抵抗の初期に特に重要にすることかてきる。動物の内因性抗生物質ペプチドは、一般に単一遺伝子の産物であり、プレプロタンパク質として合成される。多工程プロセッシングによって、微生物膜透過化を誘発することによって又は微生物表面への接着によって作用することができる成熟ペプチド又はペプチド群を得る。接着ペプチドは、感染微生物の表面に現れた炭水化物又は脂質に結合するレクチンとして作用し、よって微生物を免疫検出及びクリアランスにより受け易くする。これらの結合ペプチドは、感染に至る微生物の宿主接着を阻止する作用も行う。
抗微生物ペプチドのいくつかのファミリーが、ジスルフィド結合、アミノ酸組成、構造的立体配座及び活性スペクトルの存在に関し異なっていると確認された。これらのペプチドは、動物及び植物において著しく豊富で、かつ広く分布している。治療用化合物としてより高度の真核生物の抗生物質ペプチドの役割が、自然免疫における中心的テーマである。C型レクチン類又は炭水化物結合レクチン類はが、セレクチン類並びにMicrobial Lectins and Agglutinins、1996、ニューヨーク、ジョン・ウイリー・アンド・サンズに挙げられている微生物付着分子の宿主を特徴付けている。この引例は、レクチンを使用して宿主標的細胞上の炭水化物リガンドに結合する約60種の微生物を同定している。宿主の炎症細胞上のもの同様、微生物レクチン類は、細胞−細胞相互作用、例えは、バクテリア−内皮又は貧食細胞相互作用における認識の分子として役立つ。さらに、寄生虫の侵入、その細胞内成長及び細胞の最終的な死に対して宿主細胞を生成するする信号伝達に関与する。レクチンは、単体及び複合体の両方の、及び溶液中で自由であろうが、細胞表面にあろうが、可逆的かつ非共有結合的に単糖又はオリゴ糖と結合する。これらの細胞表面の糖類は、レクチンレセプター又はリカンドと呼ばれ、レクチンの特異性を同定する。レクチン類は、バクテリア繊毛等の特異の細胞小器官に関する細胞の表面にしばしば現れ、又はバクテリアによって作れあげられた外毒素の構造の一部である。
自然に産出する又は工作された、宿主−寄生虫接着関連信号伝達及び接着を標的とする抗接着特性を有するmAb類又ペプチド類が、宿主組織に結合する微生物を必要とする宿主感染症用の診断剤、治療剤及びワクチンを製造するために有効である。
接着によって定義される病原性
血管系を通行する多くの病原体は、種々の組織をシードする手段として剪断下に作用する接着経路を用いている。本発明者等は、この概念は、普遍的に適用でき、また任意の病原体によって異なる解剖学系(呼吸器、消化器管、尿路等)に独特の宿主接着経路の使用を示すと信じる。したがって、多くのバクテリア、ウイルス、真菌及び寄生虫微生物のビルレンスを定義する新しい手法を、宿主の伝達ネットワークを浸透する原核及び真核的接合タンパク質の検出及び特性表示に向けることができる。異なる宿主−寄生虫の関係に関するいくつかの研究によって、病原体が感染の途中で宿主の細胞−細胞接着系をどのように使用するかを明らかにする。ある種の顕著な研究の結果を示して、微生物を宿主細胞−細胞ネットワークに浸透させ、かつ感染の行路を指図して展開した機能的擬態のタイプを例証している。
多くの病原体は、血管系に侵入し、かつそれによって運ばれることによって侵入門戸から離れている組織及び器官へ散在又は通行する。いくつかの場合に、病原性バクテリア、真菌及び原生動物が、それらの病理発生中に、セレクチン類及びインテグリン類を含む宿主の接着系を巧妙に操ることが示された。
病原体による宿主細胞−細胞伝達ネットワークの倒錯の分子的根拠
タンパク質−炭水化物相互作用が、無数の生物学的出来事を制御していることが明らかであるけれど、タンパク質−炭水化物結合の低い結合定数が、生物学的伝達における炭水化物リガンドの正確な役割について疑問を起した。しかしながら、セント・ヒライア等(21)によって提案された微生物毒素−宿主細胞相互作用のモデルは、宿主によって用いられたものに対する微生物接着系に見られるタンパク質−炭水化物相互作用の類似性に注意を向け、また後者の相互作用が、レセプター/リガンド対の堅い結合ではなく特異性に関連することを示している。
堅い結合は、タンパク質−タンパク質又はタンパク質−脂質相互作用によって促進されると思われる。この原理は、認識が、タンパク質(セレクチン)−炭水化物(シアリルLe)結合によって伝達されるが、堅い結合及び平坦化が、タンパク質−タンパク質(インテグリン/リガンド)又はタンパク質−脂質結合の結果である好中球漸増に対して実証された。同様にセント・ヒライア等は、VTECホロ毒素のB−サブユニット(最小の公知レクチン類の1種)の接着が、ボツリニス、百日咳及びジフテリア毒素の作用の形態(22)の回顧でもあるタンパク質−炭水化物(毒素を標的とするために)及びタンパク質−脂質(毒素の再防虫への侵入のために)の両相互作用を援用していることを示した。この動機の普遍性には、多くのタンパク質−炭水化物−脂質伝達生物学的認識系に関する構造的かつ精力的研究を必要とする。
病原体又は毒素による宿主の標的細胞の認識及びそれに対する堅い結合は、真核細胞のアクチンネットワークの変更を生じる信号経路の活性化の前兆である(23)。一般に、これらの二次信号伝達は、しばしば細胞の死という結果となる細胞質ゾルの遊離カルシウムの増大、アクチン細胞骨格の急速な再配列又は分裂、及びリソソーム補充及び集落化を含む破壊的結果を誘発する。多くの病原性バクテリア、大部分はグラム陰性微生物は、宿主細胞に結合することによって誘発される特殊(III型)分泌系によって作られるタンパク質をコードする遺伝子を獲得し、かつ明らかに容易に共有している(24)。これらの新規のビルレンスタンパク質は、分泌されたタンパク質を正常には膜透過させる信号配列の欠如によって識別されるが、細胞質ゾル中の特異タンパク質の付着構造を含んでいると推定される。これらは、病原体と標的細胞との特異タンパク質−炭水化物相互作用、その後の細胞内の信号伝達のために必要な構造的かつ精力的な変化を促進するタンパク質−タンパク質の堅い結合の結果として侵入すると思われる。
微生物病原体による宿主接着系の分子的及び機能的擬態例
異なる宿主−寄生虫の関係に関するいくつかの研究によって、病原体が感染の途中で宿主の細胞−細胞接着系をどのように使用するかが判明し始めた。ある種の顕著な研究の結果が、病原体を宿主細胞−細胞ネットワークに浸透させ、かつ感染の行路を指図して展開した機能的擬態のタイプを例証している。宿主及び微生物接着分子が、各系において強調されている。
白血球/内皮細胞伝達ネットワーク
血管内皮細胞への接着には、白血球が血液から組織に出ることが必要である。これらの相互作用は、血液中の白血球と内皮細胞の両方によって発現される接着タンパク質によって制御される。本発明者等は、セレクチン類と呼ばれる接着分子の最近説明されたファミリーにおけるいくつかの接着タンパク質の機能を特性表示した(4、5、6、7)。セレクチン類は、それらのレクチン様構造が、標的細胞上の炭水化物の認識によって選択的な接着相互作用を伝達するので、そのように命名される(8)。1つの白血球セレクチンと2つの血管セレクチン(E−及びP−セレクチン)が定義された。内皮細胞以外に、血小板もP−セレクチンを発現する。L−セレクチンは、白血球によって構成的に発現されるか、免疫サイトカイン、ヒスタミン又は外傷性発作による内皮細胞の活性化が、E−及びP−セレクチンを誘発するのに必要である。セレクチン類以外に、サイトカイン−活性内皮細胞上のVCAM−1(9)、腸の高内皮性細静脈上のMADCAM−1、抹消リンパ節における高内皮性細静脈上のPNAd−1(10)、高炭水化物含有ムチン様分子(11、12)、及びある種のインテグリン(VLA4及びLPAM−1)(13、14)等の他の接着タンパク質も細胞−細胞相互作用を媒介する。インテグリン類は、内皮又は上皮細胞を誘発させることによって白血球又は微生物の遊出の準備において堅い結合をゆるめる働きをする重要な接着タンパク質である。
大抵の場合、白血球と内皮細胞との接着相互作用は、内皮の単層に沿っての白血球の回転によって代表される。これらの回転相互作用は、血管系を通って移動する白血球の速度の>1000倍の低下を生じさせることができる。白血球/内皮細胞相互作用の分析によって、特定のクラスの接着タンパク質が血管系に特徴的に見られる剪断下での結合を優先的に媒介することが実証されている(15、16、17、18、19)。例えば、白血球と内皮細胞との多くの十分に特徴付けられた静的な接着相互作用[例えば、ベータ−2インテグリン類(LFA−1、MAC−1)によって媒介されるもの]は、血流を反映するように設計された高剪断条件下の試験管内検定においては起こらないことかわかった(17、19)。これと異なり、剪断下に優先的に機能する接着分子が確認された。表1は、浸潤に関連した白血球−内皮細胞接着タンパク質の定義の一覧表であり、それらが剪断又は静的条件のいずれで最もよく機能するかを示している。
表1
1) セレクチン類に関係する剪断依存付着及び回転、
2) 活性化依存接着強化(回転の減速)、その後の堅い接着、
3) 内皮上の誘導性インテグリンによって制御される細胞の内皮を通過する移行。
これらの3工程は全て、創傷又は感染部位への炎症白血球の効果的な補充、又はリンパ組織のシーディングに必要である。
免疫グロブリンスーパーファミリー分子、ICAMI−3、VCAM、NCAM及びPECAMの微生物模倣物の単離は、ここに説明するようにして成される。浮遊IGスーパーファミリー模倣物の公知のリガンド、例えばインテグリントとの相互作用は、微生物模倣物の特徴付けの一部である。
そのうちのいくつかは初期の応答で説明されているように糖タンパク質である原核及び真核の両接着タンパク質の多くの例がある。セレクチン類及び微生物レクチン類を含む炭水化物結合レクチン類の全てが、主として現存している糖タンパク質であり、色々な程度に炭水化物で装飾されている。
真核接着タンパク質は、セレクチン類、インテグリン類、及び免疫グロブリンスーパーファミリー及び細胞−細胞信号伝達及び認識を促進する一連の接着分子、例えば、T細胞上のCD4及びCD8、GTP結合タンパク質(RhoA)、サイトカイン類及ひ成長因子(IL−n、TGF−β1及び肝細胞成長因子)を含んでいる。5を越えるケモカインレセプターが、白血球中に確認され、白血球の通行における大きな役割を演じているように思われる。
今や、宿主寄生虫相互作用における大きな努力が、宿主白血球、内皮細胞、上皮細胞及び神経系細胞等の宿主細胞のアクチンネットワークの変化を促進する接着微生物細胞性、分泌化合物によって開始される信号伝達に向けられている。
血液中を通行する白血球は、a)リンパ球、b)好中球、c)単核球及びd)血小板と様々に分類される。血液か持つ細胞と相互作用する、又はそれから得られる他の細胞には、抗原提示細胞(M細胞、枝状細胞、マクロファージ)及び薬理学的に活性な化合物を作成又は分泌する細胞(肥満細胞、好酸球)がある。リンパ球群には、それらが演じる異なる機能的役割によって定義される抗原反応性T細胞類(細胞障害性、ヘルパー細胞、抑制性、等)のサブセット及びそれらが発現する表面抗原類又はレセプター類の組合せがある。T細胞の2種の異なるサブセットは、宿主の免疫応答を細胞性免疫応答(Th1)又は体液性免疫応答(Th2)に向ける手助けとなる。他のリンパ球群、B細胞類は、IgMの初期単量体及びもっと後のIgD分子であり、血漿細胞に成熟した後に、免疫グロブリンを生産、分泌する膜結合免疫グロブリン類の存在によって特徴付けられる。
マクロファージは、血液が持つ単核球から発現し、また抗体の多くの細胞表面レセプター、補体、及び内皮及び表皮を貫通する移動を促進する種々の細胞−細胞相互作用を携えている。枝状細胞も、大きな運動性細胞であり、マクロファージ同様、抗原のリンパ球に対するプロセッシング/提示に関与する。
免疫系の細胞及び炎症細胞応答に関与するものの多くは、血液及びリンパ中で非接着細胞として循環し、また付着細胞として組織を通って移行する。異抗原又は炎症性刺激の存在下に、これらは、リンパ系器官中に集まり、内皮及び基底膜障壁を横切って感染部位に凝集し、そして異抗原を持つ細胞に接着することができねばならない。白血球の付着及び非付着状態間には、免疫監視及び反応の二機能に重要な、急激な転移かある。接着レセプターの3つの主なるファミリーは、白血球の局在下及び移行又はホーミングを宿主の異なる組織に指図する。免疫グロブリンスーパーファミリーは、T及びB細胞の抗原特異レセプター中に見られ、インテグリンファミリーは、内皮及び上皮を横断する白血球の接着及び移行の動的制御に重要であり、またセレクチン類は、白血球の血管内皮との相互作用に卓越している。ある場合に、これらの接着分子の対レセプター又はアドレッシンが、白血球をパイエル板、皮膚又は腎臓内皮に移行させる組織又は細胞特異性であることが判明した。血小板は、それらの白血球及び内皮細胞との相互作用を介して血管生理学の変化、及び感染及び炎症関連した薬理学的に活性の薬剤の作成に密に関係する。P−セレクチンは、血小板のα顆粒及び内皮細胞のヴァイベル−パラーデ体に貯蔵され、トロンビン等の凝固カスケードの生成物による刺激後にこれらの細胞の表面に急激に流通され、好中球及び単核球の接着を媒介する。これらの因子は、再灌流及び外傷性創傷並びに組織及び器官の機能を阻害する他の血管での出来事に作用する。
上皮細胞は、哺乳動物の消化器官、生殖泌尿器官、上部呼吸器官及び種々の器官の管腔表面を被覆する。上皮細胞は、インテグリンファミリーの多くの構成員を発現し、また病原体接着分子類(PAMs)の対レセプターとして機能する異なる糖接合体の宿主を保持している。神経系細胞の例には、星状細胞、神経膠細胞、シュヴァン細胞及びニューロンがある。神経系細胞に見られる優性宿主接着分子は、NCAM及びICAMである。PAMに結合するリガンド対レセプターは、シアル酸に富んだ構造体である。ICAM−1、VCAM−1、MAdCAM−1(パイエル板)及びPNAd−1(抹消リンパ節)を持つ内皮細胞の例。
内皮細胞は、(a)炎症伝達物質による刺激及び(b)組織又は器官環境中のそれらの位置付けに依存する1種又はそれ以上の接着分子を発現しうる。ICAMサブファミリーは、一般に、感染又は組織損傷の間に作られるリポ多糖、γ−インターフェロン、インターロイキン−1及び腫瘍壊死因子(TNF)を含む炎症伝達物質による刺激の結果として内皮細胞上に発現される。VCAMは誘導動態及びICAM類に類似した機能を有するが、ICAM類がLFA−1インテグリンに結合するのに、VLA−4インテグリンとだけ相互作用する。
血液中のリンパ球は、特殊「高」内皮細胞に結合してリンパ節に入る。異なるタイプのリンパ節中の特殊HEV上に選択的に発現した「アドレッシング」と呼ばれる分子は、ホーミングレセプターリカンドとして機能する。したかって、MAdCAM−1を発現する内皮細胞は、パイエル板及びインテスチンに関連したリンパ系の固有層の高内皮細静脈に見られる。PNAd−1を発現する内皮細胞は、抹消リンパ節に見られる。
内皮細胞上に発現したものを模倣する病原体の付着分子の単離は、付着分子のリガンドを発現する標的細胞を用いる試験管内又は生体内接着アッセイ系での本発明者等のその検出及び特定表示から始まる。例えば、病原体によって使用されるMAdCAM−1様分子を検出するために、MAdCAM−1リガンドを発現する標的細胞系、α4β7インテグリンを使用する。インテグリンを発現する線維芽トランスフェクタント類もアッセイに使用することができる。接着分子を検出すれば、その特異性が、微生物の標的細胞への接着を阻止する抗−MAdCAM−1モノクローナル抗体(MECA−367)を用いる処理によって立証される(バルガッツ(Bargatze),R.等、1995、Immunity、3:99−108)。同様に、VCAM様又はICAM様付着分子か、インテグリンα4β1又はLFA−1をそれぞれ発現する標的細胞を用いるアッセイで検出される。
百日咳 − 百日咳菌は、その糸状血球凝集素(FHA)を用いて白血球インテグリン信号伝達複合体と直接相互作用して、血管ネットワークに及びそれから移動する(25)。インテグリン類に結合する分子の記号は、Arg−Gly−Aspトリプレットである。この配列は、しはしは接着ドメインの一部として多くの他の原核タンパク質に見られた。インテグリン類は、大抵の哺乳動物細胞系の隣接細胞を結合する重要な役割を演じているので、ある種の病原体は、内皮及び上皮を横断するためにこの認識系を使用するようになった。この機構によって、百日咳菌は、それ自体の付着及び宿主細胞接着信号伝達経路を吸収することによる全身性播種の潜在能力を高める。FHAは、マウス呼吸系感染における重要な定着因子であることが証明された。感染におけるその役割は、抗−FHAmAbsで阻止することによって首尾よく鈍らせられた(26)。
マラリア − 中央アフリカ産げっ歯類マラリア病原虫及び熱帯熱マラリア原虫に感染した赤血球は、大脳マラリアに関連したしばしば重傷の合併症を招く。これらの合併症は、それら自体及び内皮に機械的に接着することによって脳の血流を妨害する感染赤血球の直接的な結果である。マウスマラリアモデルにおける血管及び白血球接着分子の役割を調べる研究において、LFA−1(インテグリン)接着分子に対するmAbを用いる静脈内処理によって中央アフリカ産げっ歯類マラリア病原虫に感染した赤血球が、脳内皮に結合しかつ血流を妨げることが防止されることが示された(27)。熱帯熱マラリア原虫に感染したヒトの患者からの赤血球を調べる他の研究によって、ヒト脳内皮への付着の手段としてE−セレクチン及びVCAM−1への特異的接着が実証された(28)。
カンジダ症 − カンジダアルビカンスに関する研究によって、それが、血液原の酵母細胞のマウス脾臓辺縁層マクロファージ及び抹消リンパ節(おそらく、インテグリン)に接着する能力の原因であるホスホマンノタンパク質をその表面に発現することが示された(29)。血管の細胞外マトリックス中のフィブロネクチンに結合するカンジダアルビカンスは、血液播種性真菌症の真菌接着を促進する直接的役割を演じると示唆された(30)。
呼吸器官病原体
呼吸器官は、病原体に対して3つの環境:鼻咽頭の線毛を持つ上皮、肺胞及び肺胞マクロファージを与える。線毛の持つ上皮に付着する病原体は、組織指向性に関し炭水化物アドレスを頼りにしている。肺胞に対する肺炎の古典的病原体の局在も、炭水化物認識に基づくものであるが、分子関与体は知られていない。宿主との微生物のアドレス認識及び信号伝達系の機能的相同を明らかにする最も決定的な研究は、肺胞マクロファージに関するものである(26)。マクロファージは、炎症を引き起こされた内皮上のリガンドを認識する接着分子のCD18ファミリー、LFA−1、Mac−1及びgp.150.954を用いることによって肺に侵入する。他の余り頻繁には使用されない経路は、肺炎球菌によって引き起こされるCD−18ではない経路を含み、また重要な伝達物質としての血小板活性化因子を包含する。肺胞マクロファージに侵入し、そこに駐在する病原体は、マクロファージに侵入し、かつ白血球からさもなくば致死の酸化的群発を妨ける手段として接着分子のCD18ファミリーを使用している。レジュネラ、マイコバクテリア、連鎖球菌及びヒストプラズマは、インテグリンそれ自体又はC3bi等の自然架橋リガンドのいずれかの種々のCD11/CD18決定子に結合する(1)。感染過程における微生物接着及び信号伝達の役割に関する最も決定的な研究が、百日咳菌を用いる感染について行われた(35、32)。百日咳菌は、マクロファージに2種の接着リガンド:百日咳毒素(PT)及び上記糸状血球凝集素(FHA)を与える。PTは六量体であり、そのBオリゴマーもC型セレクチン:フコース化ポリラクトサミンに類似の炭水化物嗜好性のレクチンである。PTのレクチンに似た特徴は、百日咳菌の線毛及びマクロファージへの接着を指図する。PTの細胞認識特性が、80%相同であり、またC型セレクチンに見られる残基(15乃至55)の領域と同一である2種のタンパク質サブユニット、S2及びS3に局在された。この配列相同性は、サブユニットが、好中球のセレクチン被覆表面との相互作用を阻害することができる点で共通の機能に及ぶ。
PTの第二の特性は、白血球接着分子のインテグリンファミリーの機能をアップレギュレーションする能力である。PT接着による炭水化物のリゲーションが、CR3に特異のリガンドである第二の接着FHAを付着させ、またマクロファージ中へのバクテリアの取り込み及び生存を誘発させるインテグリンCR3(Mac−1)をアップレギュレーションする。したがって、PT接着は、感染過程において2つの機能:アドレス認識及びマクロファージに信号を伝達して微生物のレセプター部位の増大、を有している。病原体が、肺胞マクロファージ接着系を用いて感染工程を開始し、また多くの場合に宿主接着分子を使用する能力を利己的に利用して、他の組織及び器官に広めることに「なった」と思われる他の疾病には、幡種性ヒストプラスマ症、肺ブラストミセス症、ノカルジア症、クリプトコックス症、気管支肺カンジダ症、肺アスペルギルス症、在郷軍人病及び結核症がある。
胃腸器官病原体
胃腸器官は、病原体に、胃の円柱上皮から十二指腸、空腸及び回腸のブラシ状の縁取りの上皮までを潤す酸性環境、及び結腸の立方上皮を始めとしていくつかの環境を与える。胃腸器官の管腔面は、上皮細胞層中に埋め込まれた高度に特殊化された杯細胞によって主として生産される粘液で覆われている。粘液は、ある領域と次の領域で、さらには腸管の領域内の細胞同士で化学組成が異なる。シアル酸残基に富む糖タンパク質の粘液類は、下にある上皮を微生物活性の有害作用から保護する重要な役割を演じている。
腸の正常な細菌フローラは、GI管の感染の過程を指図する重要な役割を演じている。競合及びそれらの拮抗関係及び遺伝的相互作用を促進する種々の種が存在する大腸の純質量の微生物(1m2、1010/g)は、宿主と非常に複雑な関係を生じる。胃腸器官の病原体は、細菌及び真菌の非常に大量の寄生種を含んでいる。
まとめて腸内桿菌と呼ぶ腸バクテリア病原体は、共通の抗原を共有し、かつ遺伝的に関連する幾つかの属の元に正式に分類される。腸内桿菌の共有する特性の中には、接着分子、外毒素及び内毒素を含むそれらのビルレンスに寄与する因子がある。腸内微生物間の新しい遺伝因子を交換する結果として、新しい菌株が生じ、既にある大量の腸内病原体に加わる。適切な例は、二次ビルレンス因子を保持する最近進化された病原体クローンに属する大腸菌病原体0157:H7、志賀様細胞毒素(ベロトキシン、verotoxin)及びプラスミドコード接着(34)である。
多くの腸内バクテリア感染の組織病理学、付着及び展退(A/E)は、病原体の腸上皮への特異的付着及び内毒素、ある場合には力価の高い外毒素の関与の結果である(35)。大抵の腸内病原体は、試験管内組織培養細胞及び生体内エンテロサイト及びコロノサイトの両方への細菌性結合のA/E形を示す。細胞接着の伝達物質は、細菌染色体上に存在する遺伝子集団(eaeA loci)及び/又はEAFと呼はれるプラスミドコード因子(EPEC付着因子)に依存する複雑な表現型に寄与するように思われる(36、37)。ベロトキシン原性大腸菌(VTEC)、毒素原性大腸菌(ETEC)及び腸管病原性大腸菌(EPEC)、ハフニアアルベイ(Hafnia alvei)及びシトロバクターフロインディ(Citrobacter fruendi)の多くの血清型は、eaeA陽性であり、類似した接着表現型を有している。eaeA−陰性大腸菌(38)及び胃病原体ヘリオバクターピロリ(39)によって生産されたA/E病巣は、下にある細胞骨格要素の検出可能な補充を欠いている。
2つの付着形態かeaeA遺伝子及び/又はプラスミドコード遺伝子座の発現から得られる(40、41、42)。第一又は最初の(局在)付着は、束形成線毛(BFP)と呼ばれる19kDaのEAF繊毛接着によって促進される。BFP接着は、微絨毛の表面への付着及び展退に至る事態の開始を生じる。興味のあることに、大腸菌のBFPのアミノ酸配列は、その全てがIV型フィムブリエファミリーの一員であるコレラ菌、淋菌、髄膜炎菌及び緑膿菌の線毛に類似している。19kDaの接着タンパク質が、上皮細胞上の炭水化物リガンド、又はあまり起こりそうもないが、粘液に関連する特異の炭水化物エピトープと反応することが提案されている。この付着及びその後の微定着に引き続き、細胞内カルシウム濃度の上昇、宿主細胞タンパク質チロシンキナーゼの活性化、液分泌及び重傷ベロトキシン原性大腸菌感染における細胞骨格構造の十分な変化を生じることになる信号の伝達が行われる。インチミンと呼ばれる接着構造を含む染色体コード94kDaの外膜タンパク質(OMP)によって促進される第二の付着は、微生物を上皮細胞形質膜に密に付着させ、上皮の細胞骨格タンパク質に顕著な効果を及ぼし、またある場合に粘膜下組織への侵入に至る細胞信号伝達を増幅するように思われる。大腸菌インチミンのアミノ酸配列は、偽結核エルジニア菌及びエルジニアエンテロコリチカのものに非常に類似している(44)。インバシン類は、高い親和力で、ベータ−1ファミリーインテグリンレセプター類の一員に結合して、細菌の効果的な取り込みを媒介する。したがって病原性大腸菌がOMP接着を用いてベータ−1インテグリンドアを通過し(呼吸器感染におけるベータ2インテグリン類とは非常に異なる)、また上皮細胞の細胞骨格に沿って移動すると信じる理由がある。
ヘリコバクターピロリは、世界の人口の大半に効果的に定着し、現在慢性胃炎及び消化性潰瘍形成の主因と受け入れられている(45)。この細菌は、上皮細胞及び胃壁の粘膜層に親和的である。胃上皮細胞への付着は、血液型Oの表現型に関連したフコース化血液型抗原と相互作用するレクチン様接着によって媒介される(46)。表面上皮の退化は、細胞毒素、ウレアーゼ及びLPS等のプロ炎症生成物を含む細菌生成物質の活性の予想される結果である。
大腸菌、志賀赤痢菌(1型)、ネズミチフス菌(Salmonella typhimurium)及びコレラ菌のある種の血清型は、単一32kDano「A」サブユニット及び5x7.7kDaの「B」サブユニットから成る力価の高い71kDaの多ペプチドサブユニット細胞毒(志賀様又はベロトキシン)を生産する(22)。B−サブユニットは、ホロトキシンの宿主の内皮細胞上の高親和性(Kd=1010M)の細胞表面レセプターへの結合を促進し、その中に入る。内皮細胞レセプターは、糖脂質、ガラクトースδ−1,4−ガラクトース−β−1,4−グルコースセラミド(Gb3)である(47)。A−サブユニットは、リボソームレベルで内皮細胞におけるタンパク質合成を阻害する。
大腸菌及びピロリ菌による感染の伝達物質としての細菌付着は、赤痢菌種、コレラ菌及びサルモレラ種並びに多くの原生動物寄生虫(赤痢アメーバ)及びウイルスに記載されたものより起こりそうである。上皮表面に病原体を位置させる際に、内皮表面を変える又は撤去する他のビルレンス因子(毒素、酵素等)の作用の下地を作る。これらの接着相互作用は、病原体を清浄のフローラの拮抗挙動及び腸の蠕動運動の潮紅作用から単離する働きもすることができる。
中枢神経系
細菌性髄膜炎は、微生物の感染の最初の部位から髄膜の細胞への通行の結果であると思われる。髄膜炎菌が感染した場合、侵入門は、鼻咽頭であり、微生物は、感染の明白な兆候なしに長時間そこに留まる。一方、大腸菌によって引き起こされる髄膜炎は、胃腸器官又はたまに下部呼吸器官及び尿路にその原因がある。
細胞付着は、上皮細胞上の特異の炭水化物レセプターの認識を伴う侵入門での感染を確立する役割をどうも演じているらしい。
フィネ(Finne)の研究(48)は、糖タンパク炭水化物の一部として、ポリシアル酸が、脳における細胞のアドレスの認識に重要な役割を演じているという意見を支持している。ポリシアル酸鎖は、α2−8結合によって結合されたN−アセチルノイラミン酸残基の重合体である。1鎖当たり12又はそれ以上と多くの炭水化物残基が存在する。シアル酸は、糖タンパク質に普通に見られるN−結合トリ−及びテトラアンテナリ型であると思われる核グリカンに結合している。若い哺乳動物の脳は、大人の脳が、あまりシアリル化されておらずまたより短い鎖であるのに比べて、非常にシアリル化されている。種々の研究か、ポリシアル酸の主なる役割が、シアル酸に富んだ嚢を持つ微生物を通行するための特異な分子アドレスが髄膜細胞の接着分子に存在することを示唆する脳における接着活性を調節することにあると示唆している。
髄膜炎菌の嚢型特異多糖は、シアル酸に富んだ酸性糖残渣の重合体である。大抵は、有効な免疫原であるが、髄膜炎菌のB型多糖及び大腸菌のK1多糖は、低力価の低親和性IgMクラスの抗体を刺激する。B及びK1多糖に対する劣った反応は、どうも脳ポリシアル酸と化学的に同等である嚢物質に対する免疫的な反応性のなさの結果であるらしい。いずれにせよ、髄膜炎菌又はK1を持つ大腸菌による脳細胞における接着レセプターの認識は、これらの微生物の組織親和性を説明している。
他の微生物付着系
淋菌は、内皮細胞表面に付着することによって生殖泌尿器官の感染を開始する人の必須の病原体である(40)。この付着は、線毛化株だけか、細胞に付着することかできるので、線毛関連接着によって伝達される。付着に際し、淋菌は、外膜タンパク質によるある形態の信号伝達に従って上皮細胞によって吸収されるようになると思われる(50)。多くの淋菌か、柱状上皮細胞間に侵入し、おそらく上皮細胞連結に関連するインテグリンレセプターを活性化することによって上皮下組織に到達する。
リーシュマニア症は、リーシュマニア(Leishmania)属に属する原生動物の幾つかの種の1つによって引き起こされる一群の病気である。これらの原生動物は全て、フレボトムス(Phlebotomus)属のサシチョウ蠅蝿に噛まれることによって運ばれる。リーシュマニア属の主なる表面糖タンパク質である、gp63、フィブロネクチン様分子は、寄生虫−マクロファージ相互作用に重要な役割を演じている(51)。マクロファージ中の寄生虫のその後の成長及び残存が、病気の間細網内皮系の一部又は全部の大規模な併発に寄与している。
ヘルペスウイルス
全ての公知のウイルスタンパク質のうち、二三のものは、宿主細胞タンパク質に著しい配列相同性を有しているが、ウイルス因子は、付着及び侵入のために宿主細胞上の認識分子に頼っている。しかしながら、RNAレトロウイルス及び2クラスのDNAウイルス、すなわちポックスウイルス及びヘルペスウイルスは、サイトカインの分子擬態を用いて宿主細胞機能を破壊している(20)。ヘルペスウイルスのケモカインレセプター相同体は、信号を宿主白血球の細胞質に伝達する宿主膜タンパク質を模倣し、ヘルペスウイルス複製及び/又は潜伏の確立のためのサイトゾル環境を確保している。
本発明者等がこれらの研究から引き出した大変革の結論は、全てではないが大部分の病原体が、宿主のものを機能的に模倣する接着分子を使用することによって宿主のネットワークに浸潤することを「学んだ」ということである。原核接着分子の機能的及び分子的性質を理解する本発明者等の出願は、新世代の診断試薬、治療用化合物及びワクチンの開発に至った。
本発明者等は、微生物起源及び「試験管内進化」によって同定下両方の機能的に類似しているが、抗原性的には識別できる接着分子に対する免疫化のための高力価の免疫原を検出する新規の試薬を開発する。さらに、特定の群の免疫学的に適格の細胞を、感染的接着が起こるらしい器官及び組織部位(即ち、腸管又は鼻咽頭領域)に補充する新規のアジュバントを開発する。
本発明は、微生物−宿主信号伝達及び接着を廃棄した、診断薬、治療薬及びワクチンを開発するための新規の方法である。白血球と微生物との通行の相同、最も顕著には、分子のアドレス認識、シグナル伝達、及び内皮及び上皮を通過することは、多くの微生物の接着及び信号系が宿主タンパク質及び炭水化物部分の機能的並びに分子的擬態の進化産物であることを意味している。細胞生物学及び微生物病原論のこの近似現象は、哺乳動物細胞の通行の各系に対し、ネットワークと親密に懇意な病原体が存在することを予測している。
幾つかの病原体−宿主細胞接着系の機能及び特徴が、試験管内剪断アッセイ系を用いて本発明者等によって確認された。これらの宿主−寄生虫接着系には、ベロ細胞毒原性(verocytotoxic)大腸菌、胎児三鞭毛トリコモナス、カンジダアルビカンス及びハンタウイルスがあるが、これらに限定されない。(1)接着因子及び標的細胞上のそれらの対レセプターの検出及び特性表示を助成し、かつ(2)適切な標的細胞を用いる試験管内付着の動力学を定義するために微生物接着因子に対するモノクローン抗体を開発した。本発明は、試験管内標的細胞−病原体系の各々の接着相互作用の性質及び機能を定義する。
一実施態様において、本発明は、以下のことを用意する。
1. 接着アッセイに使用するための病原体の凝集物又は懸濁液の調整。
2. 接着アッセイのために標的細胞の初代培養の調整。
3. 剪断下の病原体の標的細胞レセプターとの接着性の評価。
4. 異なるレベルの剪断力下の病原体と標的細胞との接着相互作用の親和性の評価。
5. 抗セレクチン及び抗インテグリンを含む抗接着試薬の標的細胞−病原体相互作用に及ぼす効果の試験。
インテグリン分子に対する機能的な同等物(宿主相同体)の数例がある。1)ICAM−1内皮細胞に結合するライノウイルスの表面上のインテグリン様領域;2)ICAM−1に結合するカンジダアルビカンスの表面;及び3)腸上皮上のN−アシル−ガラクトサミンに結合する赤痢アメーバの表面。
ワクチン製剤を調製して使用するために、インテグリン様付着分子(アドヘシン)をここで述べるように定義、調製する。成功の鍵は、(1)微生物遺伝子によってコードされる、ゆえに哺乳動物に異物(免疫原)である接着分子の接着部位のアミノ酸配列及び(2)凝集形態又はそれを安定化し、生体内での退化から保護する媒体中あるかの免疫装置に対する提示に依存している。
それらの自生の及び機能形態のインテグリン類、VLA、Leucam及びサイトアドヘションは、宿主由来のものであるのでワクチンの製造に使用しない。その代わりに、宿主細胞又は細胞外基質タンパク質上の類似のリガンドと反応する宿主のインテグリン分子の微生物ペプチド相同体を使用する。あるいはまた、それらと共に、ファージ−表示選択によって等「試験管内進化」を経て発展させた分子も使用することができる。本論文において、寄生虫又は病原体は、偶然に、またおそらく遺伝的盗用によって、機能的に類似しているが、宿主レセプター分子(インテグリン、セレクチンあるいは炭水化物、タンパク質又は脂質リガンド構造体)とは抗原的に異なる糖タンパク質、糖脂質又は炭水化物構造体を得た。
病原体及び宿主の両方の接着関連信号伝達及び接着性レセプター及びリガンドの同定によって、白血球、内皮細胞及び上皮細胞から成る群から選択される細胞と相互作用する病原性微生物(又は機能的類似体)のアドヘシン分子又は病原性微生物の接着分子と相互作用する宿主細胞(類)(又は機能的類自体)の接着分子から成るワクチンの開発が規定される。
新世代の生物学的製剤: 接着阻止剤
明確な感染症モデルに伴う接着の効果的な阻止を立証することによって、多くの細菌、ウイルス、真菌及び原生動物感染症用の新規のワクチン類、治療剤及び診断剤を開発する基礎が提供される。この「接着阻止技術」(ABT)は、ヒト及ひ動物両方に使用するための一連の新規の製品及び用途を生じる。宿主への通行が接着によって媒介される事であり、そして接着に基づく試薬から成る又はそれを含む効果的な新規の診断剤、治療剤及びワクチンが開発される病原体の数例には、例えば、サルモネラ、赤痢菌、コレラ菌、エルジニア、ボルデテラ、レジュネラ、カンジダ、ヘリコバクター、ナイセリア、ヒストプラスマ、リーシュマニア種、インフルエンザ、ハンタウイルス、HIVウイルス、大腸菌(VTEC)、トリコモナス、アイメリア(Eimeria)、ネズミマクムシ(Trypanosoma)、EBウイルス(Epstein-Barr virus)、肺炎球菌(Pneumococcus)、連鎖球菌、風疹(Rubella)、ヘルペス、ブドウ球菌、クラミジア(Chlamydia)及びジアルジア(Giardia)がある。
「接着阻止剤」を使用する利益
「接着阻止剤」技術は、新世代のワクチン、治療剤及び診断剤の基礎となり、また以下のような既存の治療及び検出技術に勝る利益を提供する。
ワクチン − 新規の高特異性及び組織標的サブユニットワクチン技術の開発は、侵入注射の必要を排除する経口的又は経鼻的に投与することができるより効果的かつより低コストのワクチン群を提供する。本発明者等は、特異の細胞(例えば免疫)区画の誘導部位への接着性抗原を標的とする微生物(接着性)抗原の限界ペプチドドメインを発現する生ベクター送達系から成るWu等(54)に記載されたもののような組換えワクチンを開発する。得られた免疫応答は、粘膜表面及び全身免疫区画のほぼ全域の両方で効果的であることが示された。
治療剤 − 新世代の治療用化合物の有効性を、接着性ペプチド(56)及び炭水化物(57)を用いて細胞−細胞接着相対作用を阻止することができることを示す研究で実証した。したがって、接着性レセプター又は炭水化物の両ペプチド模倣体を含む抗微生物治療剤は、病原体が、宿主細胞のレセプターリガンドに付着するのを処置又は予防するのに有効である。本発明者等は、抗接着モノクローン抗体を用いて接着性ペプチドドメインのアミノ酸配列を明らかにして、ファージペプチド表示ライブラリーを調べる(58)。このような治療剤は、無毒であり、比較的安く製造及び投与され、また抗生物質治療によくあることだが、病原性種内の突然変異による「抵抗」の発現によって妨害されない治療及び/又は治癒活性を有している。
診断剤 − 新世代の診断剤は、任意の群の病原体(例えば、サルモネラ種、連鎖球菌等)の全てのサブタイプではないが大部分に共通する主なる、共通のビルレンス因子(接着分子)を検出及び同定することができる。また、接着分子は、おそらく大抵の病原体によって血液及び他の体液中に注がれるので、適切な抗体に基づく検定(アッセイ)によって兆候の出る前に十分に検出することができる。本発明に基づく診断アッセイは、「計量棒」技術のように使用し易く、安価であり、そのうちの幾つかは、店頭(OTC)製品として売買することができる。
実施例1
細胞表面のストレプトコッカル抗原(SA I/II)に応答するT−細胞及び抗体は、“T-cell, adhesion, and β-cell epitopes of the cell surface Streptococcus mutans protein antigen I/II”と題されたKelly, C.G., Todryk, S., Kendal, H.L., Munro, G.H.,Lehner, T., Department of Immunology, United Medical School at Guy's Hospital, London, United Kingdom の、Infect. Immun.(United States), Sep. 1995, Vol.63, No. 9, pp. 3649-58において述べられているように、自然に感作したヒトで研究する。
血清抗体の応答は、唾液の受容体への細菌性接合に関与するSAI/IIのN−末端(残基39〜481)と中心(残基816〜1213)領域に支配的に指向する。T−細胞の応答も中心領域に支配的に向けられる。接着性エピトープはもちろん、免疫優勢で小数のT−細胞及びB−細胞が関連する直線状のペプチドも残基816〜1213内にマッピングされる。免疫優勢のT−細胞及びB−細胞のエピトープは残基803〜853内に確認でき、それは接着性エピトープ(残基1005〜1044)から直線配列内で分離される。接着性エピトープは、少数のB−細胞とT−細胞のエピトープ(残基1005〜1054及び1085〜1134)とオーバーラップする。免疫優勢で乱交差するT−細胞のエピトープ(残基985〜1004)は、接着性のエピトープ(残基1005〜1024)に隣接する。接着性エピトープに応答する限られたB−細胞は、口腔内をクローン化するストレプトコッカスミュータンスの系列と一致している。T−細胞の戦略といえる接着性とB−細胞のエピトープのマッピングとは、重要な機能的決定基に応答することに焦点を合わせたサブユニットのワクチンの成分を同定するための一般的なアプローチを表す。
SAI/IIのエピトープは、歯のカリエスに対するサブユニットワクチンの成分を構成する。
実施例2
抗血清は、“Antibodies to peptides corresponding to a conserved sequence of gonococcal pilins block bacterial adhesion.”と題された、Rothbard, J.B. Fernandez, R., Wang, L., Teng, N.N.,Schoolnik, G.K. の、Proc. Natl. Acad. Sci. USA, Feb. 1985,Vol. 82, No. 3, pp. 915-9に記載されたように、同類の菌株及び異型の菌株の両方から得られる無傷の線毛と交差反応する能力について淋菌株(ゴノッコッカルストレイン)MS11のアッセイを行い、それから得られる線毛の定常配列及ひ可変配列に対応する7個の合成ペプチドのそれそれに対して生成する。このペプチドはおおよそ等しいアンチペプチド応答を誘導するが、無傷の線毛と交差反応させた抗血清を生じさせる能力は実質的に異なる。保存された配列の領域に対応するペプチドに対する抗血清については、残基69−84に向かう抗血清が固体−相のアッセイとイムノブロットの両方でテストされた全ての菌株から得られる線毛を結合する点で最も有効である。また抗−69−84は、ヒトの子宮頚部内細胞を結合することかわかっている線毛のトリプシンによって生じたフラグメントを効果的に沈澱させる。この二つのペプチド(121−134及び135−151)に対する血清が、MS11線毛との交差反応を同じようにする菌株−特異性のエピトープを含んでいることは前記に示したが、異型の菌株から得られる線毛を結合する能力については異なる。抗−121−134は菌株−特異性であるが、これに対して抗−135−151は全てのテストした線毛に結合する。それぞれの血清は、ヒトの子宮癌の細胞ラインへの細菌性結合を阻害する能力について検査する。残基41−50及び69−84に対して生じた血清が、異型の淋菌株が結合しないようにうまく阻害する。
これらのぺプチドは、淋病を抑制するための効果的なワクチンの成分である。
本発明にかかる診断薬またはアッセイは、白血球、内皮細胞、上皮細胞、及び他の標的の宿主細胞からなるグループより選択された細胞と相互作用する病的器官の接着性分子に特異的なモノクローナル抗体、即ちぺプチド構築物を含んでいる。
実施例3
肺炎マイコプラスマ(Mycoplasma pneumoiae)のゲノムライブラリーは、“Identification of P1 gene domain containing epitope(s)mediating Mycoplasma pneumoniae cytoadherence.”と題された、Dallo,S.F., Su, C.J., Horton, J.R., Baseman, J.B. Department of Microbiology,University of Texas Health Science Center, San Antonio の、J. Exp. Med. (United States), Feb. 1, 1988, Vol. 167, No. 2,pp. 718-23に記載されたように、発現べクターラムダgt11に剪断したゲノムのDNAをクローニングすることによって構築する。
組換えクローンは、細胞接着を仲介する接着性P1エピトープと反応する抗−肺炎マイコプラスマmAbを用いてスクリーニングする。異なる大きさの挿入物を持った10個のクローンが単離される。これらのクローンは、P1遺伝子のCOOH末端に局在するP1配列を持っている。全てのクローンは、肺炎マイコプラスマで感染した患者の急性期及び回復期の血清と反応する融合タンパク質を産生する。おもしろいことに、一つのクローン、即ちP1−7は、一個のコピーとして肺炎マイコプラスマのゲノムに存在している13個のアミノ酸の領域に入るエピトープを含んでいる。
この細胞接着性が関与するエピトープを確認することによって、ワクチン及び血清診断用プローブとして用いることのできる合成ペプチドの製造が可能になる。
実施例4
治療用ペプチド(またはmAbもしくはmAbフラグメント)は、病原体の接着性分子を擬態して、白血球、内皮細胞、上皮細胞及び宿主の持つ他の標的細胞からなるグループより選択される細胞の受容体分子と反応する分子、あるいは、宿主の接着の信号または接着性分子を擬態して病原体の接着性分子と反応する治療用ペプチド(またはmAbもしくはmAbフラグメント)を含む。付着分子の接着性部位におけるペプチドドメイン及びその部位の隣にあるペプチドドメインを検出して決定するためのmAbプローブを開発することがここに記載されている。
細胞内の寄生体を複合する免疫性に関する研究は、最近ではT−細胞によって認識されたペプチド配列の同定に重点が置かれており、それは種特異性の保護作用のあるエピトープを発見すること、またTh2の応答パターンに対してTh1の理解のある選択をすることといった二重の目的を伴うことが多い。この点に関しては、“Adjuvants,endocrines and conserved epitopes; factors to consider whendesigning”therapeutic vaccines”と題された、Rook, G.A., Stanford,J.L., Medical Microbiology, UCL Medical School, London, U.K.の、Int. J. Immunopharmacol.(英国)、Feb. 1995, Vol.17, No.2, pp.91−102 を参照のこと。
しかしながら、本発明は、Th2のリンパ球活性に対するTh1のバランスがエピトープによって決まるのではなく、むしろ細菌成分のアジュバントの影響によって決まること、また、局所の内分泌効果はリンパのノードマクロファージにおける酵素の作用で、プロホルモンが活性な代謝物に変換することによって仲介されることを示している。サイトカインは、これらの経路においてメディエーターとしての役割を果たす。慢性疾患の状態では、T−細胞の機能がTh2の方向にシフトする傾向がある。発明者らは、アガラクトシルIgGについて推定されている役割などのこの傾向の免疫性病理論上の結果は内分泌系の変化が関与していることを示唆しており、それがサイトカイン−視床下部−下垂体−副腎の軸によってのみもたらされるのではなく、過剰なレベルのTNFアルファ、TGFベータ、及びIL−6のようなサイトカインが末梢の内分泌器官に直接作用することによってももたらされることについて説明している。発明者らは、複合微生物に対する保護的な細胞−仲介型応答を行うために標的に向かうエピトープが、通常は種特異的でないことを明らかにしている。
結核では、種−特異性の成分に対する細胞性の応答が保護作用というよりむしろ免疫病理学と関連していることが明らかである。本発明の原理を応用すると、多剤−抵抗性疾患などの結核の免疫治療に対して顕著な効果をもたらす。
実施例5
モノクローナル抗体の製造
モノクローナル抗体は、以前の刊行物(10,11)で報告された充分に確立されている手法にしたがって製造する。ハイブリドーマは、接着作用が陽性の大腸菌またはカンジダアルビカンス(Candida albicans)の抽出物より調製した精製ずみの接着性物質のいずれかを用いて免疫化したマウスの脾臓−誘導型B−細胞より作られた。すべての場合において、Balb/cマウスは生後8−12週間のものを、ハイブリドーマ及び抗体製造のために用いた。
免疫感作のプロトコール: 一次免疫感作用抗原は、0.5mlのPBSに懸濁し、CytRx7 TiterMaxJ ♯R-1 に50/50の比率で乳化させた接着性ワクチン、10−20μgに調節した。全ての場合、皮下注入(SC)によるルートをマウスの毒性反応を回避する目的で用いた。免疫化したマウスは14日間飼育し、ELISAによって抗体応答をテストした。力価が低い場合には、同じ用量の抗原でそのマウスを追加抗原刺激し、28日間飼育してからテストを行った。この工程を、二つの抗原によってもたらされる目的とする抗体力価になるまで2週間の間隔をおいて繰り返した。
ELISAスクリーニングプロトコール: ELISAアッセイは、Costar普遍的電子対共有型表面のアッセイプレートと、細菌性抗原の結合のための標準的なプロトコールを用いた。このシステムは2段階または3段階の成長系を用いており、そこでは接着剤またはベロ毒素かUV架橋によって96ウェルのアッセイプレートに共有結合されている。第1段階の抗−接着性の特異的マウス血清またはハイブリドーマの上澄みの抗体を希釈し、接着剤を結合させてそのプレートをBSAでブロックしたあとでそのプレートウェルにおいてインキュベートした。非−特異的に結合した第1段階の反応体を除去すべく洗浄した後、ペルオキシダーゼが結合した抗−マウスの第2段階抗体をそのテストウェルに添加し、インキュベートを行ってから洗浄した。続いて基質をそのウェルに添加して、自動化ELISAプレート読み取り機を用いて連続的に読み取りを行うアッセイを進行させた。目的とする感度が得られない場合には、シグナルを増幅させるために第3段階を行った。
ハイブリドーマ融合プロトコール: 抗−接着性及び抗−ベロ毒素ハイブリドーマをサブクローニングして選別した。即ち、1)ハイブリドーマ細胞数が充分であるならば、「HAT」培地で限定的に希釈することによってサブクローニングが行われる。2)mAb−陽性のサブクローンをうまくELISAスクリーニングし、抗−接着性mAbを大量に製造するために、そのハイブリドーマを血清を含まない培地に適合させた。
実施例6
病原体−標的細胞の相互作用
病原体−標的細胞の剪断依存性の相互作用の分析を、下記に記載したように誘導した。白血球/内皮細胞の相互作用を、これらの研究でモデルシステムとして用いた。
新しく単離した標的細胞の調製− 因子III であってLDL−受容体陽性のヒトのへその緒の内皮細胞(HUVEC)と商業的に入手したHUVEC[内皮細胞成長培地(Clonetecs, EGM)中で培養される]、またはE−セレクチンcDNAトランスフェクタントを、剪断実験の少なくとも24時間前に滅菌ガラスからなる直径1.36mmのキャピラリー管(Drummond Scientific、Broomall, Penn)の内部表面にコンフルエントに達するまで成長させた。アッセイを行う4時間前に、その内皮細胞をIL−1(1ユニット/ml)を用いて処理することによって、E−セレクチンと他の接着性分子を発現させた。
腸の上皮細胞は、ウシ胎児の小腸を単離して切開し、続いてハンクスの平衡塩類溶液中でトリプシン−EDTAを用いて処理することによって単離した。細胞を植え付け、T−25フラスコでコンフルエントに達するまで増殖させてから収集し、液体窒素中で凍結した。その細胞を、以前よりウシ上皮細胞に特異的であることがわかっていて、95%の上皮細胞よりも多いことがわかっている抗−ウシモノクローナル抗体を用いてそれらの表現型についてテストした。
上皮細胞を解凍し、上皮細胞生長培地内のボロシリケート製のキャピラリー管(内部の直径が1.3mm)に植え付け、コンフルエントに達するまで増殖させた。上皮細胞を含むキャピラリー管を、100mMのPMAを用いて4時間活性化させるか、または活性化しないで閉じた再循環型の剪断ループシステムに導入した。
剪断分析の誘導− 管の形成は、ガラス製のキャピラリー管の一端にとりつけることによって、培地及び細胞が再循環する閉じたループを形成し、続いてその管を逆さの顕微鏡に取り付けた。スピード可変型のぜん動ポンプを用い、流れをin vivo での流れの剪断条件(1−3ダイン/cm2)を模擬するように調節した。循環ループは、HUVECの相互作用性の表面を通過して白血球が連続的に再循環している間に、種々のmAbを多数回注入できるようになっている。逆さの顕微鏡ビデオ−捕獲システムは機械化段階で用いられるものであるが、それは標的細胞の単層が完全な長さで残るようにし、続いて行う分析の際の相互作用の領域を高い分解相のコントラストで記録できるようにした。球に結合させたりまた微生物を単層にしてプランクトン型にしたりといった接着が確立されており、それは少なくとも10分間、ビデオテープを動かしつつ連続的にモニターでき、その間コントロールまたは実験条件は整えられて、維持されていた。細胞の相互作用は更に10分間、観察してビデオテープに記録した。活性化されたBUVEC、即ち上皮細胞の回転に乗っている細胞の数は、接着性変形体を注入する前と後でモニターし、その記録の個々のフレーム分析を行うことによって測定した。データは、時間当りに見える範囲内に回転している細胞の数として記録した。回転スピード及び回転の挙動性などのパラメーターも分析した。
実施例7
抗−細菌性ペプチドのファージ親和性精製法
mAbによって結合したエピトープを運搬するファージの親和性精製法は、次のように行った。即ち、ファージのノナペプチドディスプレイライブラリーから得られる1×1022個のファージを、4mgの抗−接着性ブロッキングmAbで複合化した1.0mlのセファロースビーズに結合させた。このビーズを4℃で16時間、緩和に反転させてファージと混合した。続いてこの混合物を5mlのプラスチックカラムバレル(Evergreen)にかけ、結合していないファージを50mlのファージ緩衝液(50mMのトリス−Cl、pH7.5、150mMのNaCl、0.5%のトゥイーン20(v/v)、1mg/mlのBSA)を用いて洗浄することによって除去した。結合したファージは2.0mlの溶出用緩衝液(0.1Mのグリシン、pH2.2)を用いてカラムから溶出し、その溶出液のpHを2Mのトリズマ塩基を4滴入れることで直ちに中和した。ファージの力価(ノナペプチドライブラリー)は、標準法にしたがってプラークアッセイ法によってそれぞれのカラムの溶出物について測定した。このカラムマトリックスは、第2回目、第3回目の親和性精製法で再利用するために、10mlのPBS、pH7.0で洗浄し、続いて0.02%のアジ化ナトリウムを含む3.0mlのPBSを用いてさらに洗浄してから保存した。このカラムは次の親和性精製法で用いるときまで4℃で保存し、再利用するにあたっては、増幅させたファージと混合する前に20mlのファージ用緩衝液を用いてすすぐことによって調製した。抗体−特異性の選別法でのコントロールとしてビーズに抗体を結合させていないカラムを調製し、ファージの親和性精製法のすべてのステップをこのコントロールカラムについて行い、得られたファージのサンプルを配列決定することによって、抗−SEまたはPA接着性ブロッキングmAbによって認識されるペプチド配列を決定するデータを提供することができた。
実施例8
ウシの腸の細胞における大腸菌(E. coli)の接着性
現在では、肉のサンプル中におけるVTECの検出及び同定は、根を詰めた仕事であるとともに技術的に困難な従来の培養による血清学的方法に基づいている。収穫前にVTEC微生物を食品動物中で検出することは、食物が運搬する腸の疾患の起こり易さを減少させる最も有効な手段であることは明らかであり、それは、すべてのVTECによって剪断される二種の有毒な因子、即ち、時にはベロ毒素と言われる志賀毒素様毒素(slt)及び腸内細胞との特異的な相互作用を促進する接着性タンパク質(接着剤)の抗原性を利用する高い特異性を持つ診断用の道具を開発するためのアプローチである。発明者らは、臨床上のサンプル、即ち試料の便中において死んでいてもよいし生きていてもよいか、VTEC微生物を同時に「捕獲し」、かつ同定する診断用アッセイを用いて、試料の便中に含まれるVTECを単離して同定する。このアッセイで用いられる検出試薬は、VTECの接着性エピトープに対するモノクローナル抗体と、志賀毒素様毒素(slt)に対するモノクローナル抗体である。
このアプローチに対する合理性は、VTECの有毒な因子によって促進される二つの結果が、VTEC−誘導性の腸内疾患に特徴があるというたくさんの観察(4、5、6、7、8)に基づいている。これらは大腸の微絨毛の接着性−仲介型付着と除去(A/E)、ベロ毒素−誘導型の出血、及び腎臓障害である。有毒な因子として、VTEC接着性とベロ毒素は、抗原性があり、抗体−ベースのアッセイ技術に用いられる高い特異性のマーカーを意味する。VTECは二種の抗原的に区別できる接着性タンパク質を有しており、それは共同して機能するか、あるいは微絨毛にVTECの付着を単にもたらすためのみ機能する。一つ目の接着性タンパク質は索形成繊毛(BFP)とも言われる遺伝子座をエンコードするプラスミドのフィムブリエ遺伝子産物である。このフィムブリエの接着は、微絨毛に非−親密性の、即ち局所的な接着を促進するらしい。二つ目のものはOMP接着剤とも言われる94−kDaの外側の膜のタンパク質(OMP)であり、腸内細胞と親密な接触を促進する。
材料及び方法− 簡単な免疫磁性のビーズは、商業的に、例えば、Dynal から入手し、Dynal によって推奨されているプロトコールを用いて、接着剤またはSLTmAbを用いて被覆した。本質を述べると、このビーズを適当な量のmAbを用いて30分間、4℃で混合し、磁性粒子濃縮器中で収集し、5回洗浄してから最終的に緩衝液に懸濁した。リン酸−緩衝化食塩水(PBS)に懸濁したさまざまな濃度のVTECを被覆したビーズと反応させることによって、このビーズの捕獲効率を測定した。このビーズに付着した細胞をDAPIを用いて染色し、エピ蛍光顕微鏡法を用いて検査することによって付着した細胞の数を測定した。肉汁培養物の上澄みの液体に含まれるsltを検出するために、抗−sltで被覆した磁性のビーズを用いて遊離のsltを捕らえ、次の蛍光物質でラベルした抗−sltが関与するサンドウィッチ法を用いて同定した。
大腸菌株の懸濁液、即ち3A(R.A. Wilson, Penn State Universityから入手)と932(U. S. E. P. A.から入手)を血液寒天プレートとトリプトン培地上で増殖させてから、そこから収穫し、磁気化されたビーズに接合させるため、そして剪断分析を行うために生きたまま、またはホルマリンで固定化して用いた。ループシステムにウシの上皮細胞(上記を参照)を満たしたキャピラリー管を組み入れると、培地としてハンクスバランス塩溶液、即ちHEPES(pH7.0)を用いた場合、フロー−誘導性の剪断力は2ダインで流れのピークを持つ脈動する波として確立した。大腸菌被膜を施したビーズは、PBSに懸濁されていて、注入口から剪断的な流れに拡散した。大腸菌被膜を施したビーズと上皮細胞との相互作用は、ビデオマイクロスコピーによって観察し、永久記録としてビデオテープに記録したが、それはオフ−ライン形のコンピュータイメージ分析を行うためでもある。ビーズ結合性の大腸菌の接着性は、接着性の相互反応のタイプ(回転式または据置式)、特徴(一個のビーズか集合したビーズか)、及び接着性の相互作用の数について、それぞれの状態の分析に対して10分間の相互作用の間隔をおいて分析した。ハイブリドーマ及びモノクローナル抗体は、大腸菌の0157菌株の種々の細胞表面決定基を認識する免疫化したマウスの牌臓細胞から産生した。0157:H7がウシの腸内細胞に剪断力依存性で接着していることを証明することにより、ウシの細胞に細菌性の付着分子と結合構造が存在して機能していることが確信された。接着性は、接着の発生を明らかに助長する微生物の培養状態(血液寒天上の生長)に依存していた。血清は、「肉汁で増殖させるか血液寒天で増殖させるか」という0157大腸菌の培養状態によって促進された抗原性の違いを認識する。このデータは、肉汁において増殖させた細胞では認められなかったこれらの工程によって認識される、血液寒天が特異的細胞表面の接着の発生に影響を与えることを示唆している。懸濁液から大腸菌0157:H7を捕獲することは、インキュベート方法にはもちろん依存しているが、用いた磁性粒子のタイプと量にも依存している。1×105 CFU/mlに含まれる細胞の98%までを、これらの方法を用いた実験室での条件で捕獲することかできる。付着した細胞の60%だけが、溶出剤によって磁性粒子から除去された。地上のビーフサンプルに接種したほとんど0157のほとんど100パーセントは、免疫磁性の分離(IMS)工程の改善によって検出した。
発明者は、数個のペプチド及びそれらのcDNA配列を確認し、それらをワクチン供給システムに組み入れる。これらのペプチドにはa)大腸菌0157:H7のベロ毒素のBオリゴマーの接着性領域を擬態するKPHTHKHKVからなるアミノ酸配列を持つペプチド11、及びb)大腸菌0157:H7のもう一つのBオリゴマーの接着性領域を擬態するDDTFTVKVDGからなるアミノ酸配列を持つペプチドDGが含まれる。
実施例8の参照文献
1. Karmali, M.A.., 1989. Infection by verocytotoxin-producing Escherichia coli. Clin. Microbiol. Rev. 2:15-38.
2. Wells, J.G., L.D.Shipman, K.D.Greene, E.G.Sowers, J.H.Green,D.N.Cameron, F.P.Downes, M.L.Martin, P.M.Griffin, S.M.Ostroff,M.E.Patter, R.V.Tauxe, and I.K.Wachsmuth. 1991. Isolation of Escherichia coli serotype 0157:H7 and other shiga-like toxin-producing E.coli from dairy cattle. J. Clin. Microbiol.29: 985-989.
3. Doyle, M.P., and J.L. Schoeni. 1987. Isolation of Escherichia coli 0157:H7 from retail fresh meat and poultry. Appl. Environ.Microbiol.53: 2394-2396.
4. Pyle, B.H., S.C.Broadway, and G.A.McFeters. 1995. Arapid,direct method for enumerating respiring Escherichia coli in water. Appl. Environ. Microbiol. 61: 2614−2619.
5. Junkins, A.D. and M.P.Doyle. 1989. Comparison of adherence properties of Escherichia coli 0157:H7 and a 60-maga-dalton plasmid−curedderivative. Cirr. Microbiol. 19:21−27.
6. Tzipori, S., R.Gibson, J.Montanareo. 1989. Nature and distribution of mucosal lesions associated with enteropathogenic and enterohemorrhagic Escherichia coli serotypes in piglets and the role of plasmid−mediated factors. Infect. Immun.57:1142-1150.
7. Tesh, V.L. and A.D.O'Brien. 1992. Adherence and colonization mechanisms of enteropathogenic and enterohemorrhagic Escherichiacoli. Microb. Pathog. 12:245-254.
8. Louie, M., J.DeAzavedo, R.Clarke, A.Borczyk, H.Lior, M.Richter and J.Brunton. 1994. Sequence heterogeneity of the eae gene and detection of verotoxin-producing Escherichia coli using serotype-specific primers.Epidemiol. infect. 112: 449-461.
実施例9
カンジダアルビカンスの接着性分子及び臨床試料における力価の検出
カンジダアルビカンスは、ヒトに隙があると発症する真菌性の疾患の最もありふれた原因であり、それは病院の血液流感染症が起こる場合の第4番目に引き起こされる原因となっている(15)。広まったカンジダ症(candidasis)の病因論で重要なステップは、宿主内の特異的な組織の位置に付着するカンジダ(Candida)細胞の能力に関係しているらしい(7)。適当な真菌分子をサーチすることがつまらないわけではないが、カンジダアルビカンス(C. albicans)の表面抗原性の形成は、in vi tro(3、4、5)及びin vivo (6)のどちらにおいても可変である。最近ではCutlerらが、カンジダアルビカンス酵母細胞が脾臓に隣接するゾーンのマクロファージ及び周辺のリンパ節の特定の領域にあるマクロファージに接着するために応答するカンジダの接着剤を単離した(10)。この接着剤は、ホスホマンノタンパク質複合体(PMC)のマンナン部分(12)の一部であり、細胞表面の大部分を表示する。ある種の接着剤は、PMCの酸に不安定な部分に局在しているβ−1,2−リンクのテトラマンナンとして同定されており、別の接着剤は、複合体(11)の酸に安定な部分に存在する。したがって、患者の血清中に含まれるマンナン接着剤を検出することは、疾患について信頼のある指標となることがわかるであろう。この接着性は、真菌が増殖する際に豊富に産生され、容易に細胞表面から分離される。カンジダの接着性部位に特異的で高い親和性を持つモノクローナル抗体を用いると、本発明にかかる、広まったカンジダ症に対する迅速で、そして信頼性のあるテストを開発するに至る。
患者の血清中に真菌性の接着が存在すると、疾患が活性であることを示しており、コロニーを形成していない。カンジダのマンナンは真菌の増殖の際に自発的に放出されるため、アッセイはこのポリサッカライドを検出するように設計される(8)。
診断用溶液を形成するためのアプローチには、患者の体液や細胞に含まれるカンジダ抗原を、高度に特異的なモノクローナル抗体(mAb)、即ち体内で生長して運ばれ始める場合にその微生物から分離されたり放出されたりするカンジダ抗原に指向するモノクローナル抗体(mAb)を用いて早期にそして迅速に検出することが含まれる。本発明は、感染したマウス及びヒトに存在するカンジダ抗原を検出するために、カンジダ細胞の表面抗原の配列に対して特異的なmAbのパネルをテストする。抗−接着性モノクローナル抗体及びin vitroでカンジダアルビカンスによって分離されるかそこから抽出される未知の細胞表面の決定基に指向するモノクローナル抗体の開発及び利用は、感染したマウス及びヒトの体液や細胞に存在するカンジダ抗原を検出するためのものとなるであろう。発明者らは、カンジダアルビカンスのホスホマンノタンパク質接着剤の領域を擬態するアミノ酸配列を持つカンジダペプチドを開発する。
カンジダ抗原を検出するためのELISAテストの開発
本発明は、血清及び宿主細胞においてカンジダ接着か存在することを検出するキーとなるアッセイを提供する。このアッセイは、抗体捕獲/サンドウィッチELISA法を用いている。カンジダアルビカンス抗原に特異的な捕獲抗体は、ポリスチレン製のマイクロタイタープレートの表面を被覆するために用いた。結合しなかった捕獲抗体を適当に洗浄して除去し、かつそのプラスチックプレート上の反応しなかった部位をブロックした後、カンジダ抗原を含む血清を抗体−被膜したウェルに添加し、インキュベートしてから結合しなかった血清を除去すべく洗浄した。この抗原に特異的な二つ目の抗体をそのウェルに添加し、前の捕獲抗体に結合した抗原と反応するようにしてから結合しなかったすべての物質を除去するために洗浄した。この第2の抗体に特異的であってかつ適当な酵素が共有結合で結合した第3の抗体をそのウェルに添加することによって、ウェル中に含まれる全ての第2の抗体に結合させた。結合しなかった第3の抗体を洗浄した後、第3の抗体の持つ酵素に対して特異的な適当な発色性の基質をそのウェルに添加した。適当な正のコントロールと負のコントロールに比較したところ、このウェル中の色彩反応によって初めのテスト用血清に含まれていたカンジダ抗原の存在を検出できた。抗原−刺激した正常マウスの血清中に含まれる最小量のCandida抗原が検出できるように、一旦、ELISAアッセイを最適化してから、さまざまな度合の出血性カンジダ症が広まっているヒト及びマウスから得られる血清を検査した。
マウス及びヒトの「淡黄褐色の被膜」を持つ細胞及び血清に対するカンジダ可溶性接着の検出
分離したカンジダ細胞表面の決定基かカンジダアルビカンスで感染して早期に発生する末梢の白血球細胞に付着することは、感染した患者から新しく採取した血液の淡黄褐色の被膜を持つ細胞を用いて迅速な診断用テストを行う際の基礎として作用する。
抗−接着性のmAb及びmAbは、(a)感染したマウスから得られる血液の「淡黄褐色の被膜」の層として表わされる末梢血液の白血球、(b)抗原−刺激を行ったヒト及びマウスの淡黄褐色の被膜を持つ細胞(in vitroで結合する)、及び(c)現存しているmAb及び新しいmAbを利用するカンジダアルビカンスで感染させた患者から得られるヒト血清のサンプルに接着する可溶性のカンジダ細胞表面の決定基の細胞内分布を検出し、測定するために開発した。淡黄褐色の被膜を持つ白血球上のカンジダ抗原の分布は、フローサイトメトリーを用いて行う細胞群の分析法と、免疫蛍光法またはELISA法を用いて行う抗原の検出法とを組み合わせることで測定した。
抗体試薬のパネルは、カンジダアルビカンスで感染させたマウス内の分離した細胞表面抗原を検出する際に用いることができる。カンジダ細胞表面の決定基を含有するワクチン調製物は、カンジダアルビカンスの化学的抽出液から、またはカンジダ培養物の上澄みから調製し、マウスを免疫感作するために用いた。カンジダ細胞表面のワクチンは、a)カンジダアルビカンス培養物の上澄みにある分離した細胞表面決定基、b)カンジダアルビカンスのEDTA抽出物、及びc)カンジダアルビカンスの2−ME(2−メルカプトエタノール)抽出物から調製した。
ハイブリドーマは、カンジダアルビカンス細胞表面の決定基に応答する力価の高いポリクローナル抗体を作り出す動物の脾臓細胞から調製した。ハイブリドーマを作るための方法と、モノクローナル抗体を製造するための方法は、上記に記載されている。
カンジダ接着に向かうモノクローナル抗体を用いて研究を行った結果は、カンジダによって発生するホスホマンノタンパク質(PMP)が血清中に1−10ngの範囲内で含まれるのを検出できることが明らかになった。そのうえ、カンジダの抗原性についての別の研究では、カンジダアルビカンスについての血液培養物が陰性の場合でさえも、感染したマウスの70.4パーセントにカンジダの接着を検出できることを示していた。これらの研究は、カンジダ感染症に対する高い感受性の診断用アッセイを提供する。
発明者らは、マウスを受動的に免疫感作することによってカンジダアルビカンスと戦えることがわかっているモノクローナル抗体調製物を用いてファージディスプレイライブラリーを探索することにより、PMPのキーとなる接着性ドメインを擬態するペプチドをうまく製造した。このペプチドは、カンジダアルビカンスが宿主の標的細胞に付着するのを遮断できることが明かである。現在では、オリゴヌクレオチド配列は、ペプチド配列データから合成することができ、そして生きたベクター〔例えば、ネズミチフス菌(Salmonella typhimurium)または赤痢菌(Shigella)の菌株〕に挿入するためのプラスミド構築物に導入される。得られる組換えワクチンは、成体のマウスに経口投与され、その後で粘膜と全身性の免疫応答についてアッセイが行われる。
実施例9の参照文献
1. Anttila, V.J., P.Ruutu, S.Bondestam, S.E.Jansson, S.Nordling,M.F'arkkil'a, A.Sivonen, M.Castren, and T.Ruutu. 1994. Hepatosplenic yeast infection in patients with acute leukemia: a diagnostic problem. Clin. Infect. Dis. 18:979-981.
2. Berenguer, J., M.Buck, F.Witebsky, F.Stock, P.A.Pizzo, and T.J.Walsh. 1993 Lysis-centrifugation blood cultures in the detection of tissue-proven invasive candidiasis. Diagn. Microbiol.Infect. Dis. 17:103-109.
3. Brawner, D.L. and J.E.Cutler. 1984. Variability in expression of a cell surface determinant on Candida albicans as evidenced by an agglutinating monoclonal antibody. Infect. Immun. 43:966-972.
4. Brawner, D.L. and J.E.Cutler. 1986. Variability in expression of cell surface antigens of Candida albicans during morphogenesis.Infect. Immun. 51:337-343.
5. Brawner, D.L. and J.E.Cutler. 1986. Ultrastructural and biochemical studies of two dynamically expressed cell surface determinants on Candida albicans. Infect. Immun. 51:327-336.
6. Brawner, D.L. and J.E.Cutler. 1987. Cell surface and intracellular expression of two Candida albicans antigens during in vitro and in vivo growth. Microbial. Pathogen. 2:249-257.
7. Cutler, J.E. 1991. Putative virulence factors of C.albicans.Ann. Rev. Microbiol. 45:187-218.
8. de Repentigny, L., R.J.Kuykendall, F.W.Chandler, J.R.Broderson,and E.Reiss. 1984. Comparison of serum mannan, arabinitol,and mannose in experimental disseminated candidasis. J. Clin.Microbiol. 19:804-812.
9. Han, Y. and J.E.Cutler. 1995. antibody response that protects against disseminated candidiasis. Infect. Immun. 63:2714-2719.
10. Han, Y., N.van Rooijen, and J.E.Cutler. 1993. Binding of Candida albicans yeast cells to mouse popliteal lymph node tissue is mediated by macrophages. Infect. Immun. 61:3244-3249.
11. Kanbe, T. and J.E.Cutler. 1994. Evidence for adhesion activity in the acid−stable moiety of the Phosphomannoprotein complex of Candida albicans. Infect. Immun. 62:1662-1668.
実施例10
ベロE6細胞へのハンタウイルスの接着の特徴
ヒトにおけるハンタウイルスの感染症を検出するための満足のゆく診断法及びそのウイルスを阻止するためのワクチンはこれまでなかった。ハンタウイルスは、ウイルス抗−受容体によって細胞受容体を認識することによる感染性の工程を経て細胞に付着する。ハンタウイルスに対する細胞の受容体と抗−受容体が何であるかはわかっていない。両方の実在物の正体を明らかにすることは、抗−ウイルス薬や有望なワクチンを開発する上で特に重要である。発明者らは、ハンタウイルス感染症の接着結果と病因を特徴づける、in vitroで新規な分析的なアプローチを用いて、これらの構造を同定するとともに特徴を明らかにする。
分子のクローニング: 検出したウイルス(類)の小さな(s)ゲノムと中くらいの(M)ゲノムを標準法(5)を利用してクローニングし、プライマー(M−3’(+)、M−5’(−)、S−3’(+)、S−5’(−)、M−OP(+)、など)を用いる。
発明者らが発見したMプライマー及びSプライマーは、ハンタウイルスの小さなゲノムと中間のゲノムをそれぞれクローニングするために用いられる。cDNAは、大腸菌またはバキュロウイルス(Baculovirus)ベクター(細菌性のトランスフェクタント)にサブクローニングすることによって発現させる。大腸菌で発現させるためにはInvitrogenより提供されているpRSET及ひpTRCHisキットが、またバキュロウイルスで発現させるためにはInvitrogenのpBluBacHisキットが用いられる。組換えタンパク質は金属キレートクロマトグラフィー(Invitrogen)によって精製する。ハンタウイルスのエンベロープの糖タンパク質であるG1及びG2は、宿主細胞に対する接着性を研究する際のターゲットとして働く。
モノクローナル抗体の製造: 大腸菌またはバキュロウイルスで発現させることによって作った組換え抗原を用いてモノクローナル抗体を合成するためにはマウスを用いる。組換え体で動物を感染させるため、即ち免疫化するために生きたウイルスは用いられない。BALB/cマウスは、組換えタンパク質(G1、G2またはN)をPBSに懸濁させ、CytRxタイターMax#R−1で50/50の比率で乳化したもの用いて皮下注射で免疫感作する。
抗体検出法: 全ての抗体検出法は、シンノンバーウイルス(Sin Nombre virus)の検出のためにthe Centers for Disease Control(CDC)によって開発されたELISAによって行なわれる。この方法は、半−定量的であり、ヌクレオキャプシッド抗原(N)に対する抗体のみを検出する。このアッセイは、標準的なELISAにおいて糖タンパク質であるG1及びG2の組換え抗原の発現体を用いることによって発展させることができる。エンベロープタンパク質は、ウイルスの感染力を中和する際に重要であると考えられる。
接着性のアッセイ: ハンタウイルス受容体及び抗−受容体分子の性質及び機能を調べようとして接着結果を分析する際には、ベロE6標的細胞を用いて大腸菌で発現させた組換え抗原の使用が関与する。エンベロープの糖タンパク質であるG1及びG2やヌクレオキャプシッド抗原(N)を発現するE. collは、G1、G2またはNタンパク質に向かうmAbで被覆した常磁性のビーズと反応させ、ここに記載した工程に従って剪断力のあるところで検査する。
実施例10の参照文献
1. Duchin, J.S., F.T.Koster, C.J.Peters, G.L.Simpson, B.Tempest,S.R.Zaki, T.G.Ksiazek, P.E.Rollin, S.Nichol, E.T.Umland, R.Moolenaar, S.Reef, K.Nolte, M.Gallaher, J.Butler, and R.Breiman.1994. Hantavirus pulmonary syndrome: a clinical description of 17 patients with a newly recognized disease. . N. Engl.J. Med. 330:949-955.
2. Foucar, K., K.B.Nolte, R.M.Feddersen, B.Hjelle, S.Jenison,J.McLaughlin, D.A.Madar, S.A.Young, S.R.Zaki, and L.Hughes.1994. Outbreak of Hantavirus pulmonary syndrome in the southwestern United States. Response of pathologists and other laboratorians.Am. J. Clin. Pathol. 101:S1-58.
3. Nichol, S.T., C.Spiropoulou, S.Morzunov, P.Rollin, T.Kasiazek,H.Feldmann, A.Sanchez, J.Childs, S.Zaki, and C.J.Peters. 1993.Genetic identification of a hantavirus associated with an outbreak of acute respiratory illness. Science 262:914-917.
4. Childs, J.E., T.G.Ksiazek, C.F.Spiropoulou, J.W.Krebs, S.Morzunov, G.O.Maupin, K.L.Gage, P.E.Rollin, J.Sarisky, R.E.Enscore,J.Frey, C.J.Peters, and S.Nichol. 1994. Serologic and genetic identification of Peromyscus maniculatus as the primary rodent reservoir for a new hantavirus in the SW United States. J.Infect. Dis. 169:1271-1280.
5. Ausubel, F., R.Brent, R.Kingston, D.Moore, J.Seidman, J.smith, and K.Struhl. 1995. Current protocols in Molecular Biology. Grennne Publishing Associates and Wiley-Interscience,New York.
実施例11
ウシの標的細胞への三鞭毛トリコモナス(Tritrichomonas foetus)の付着
三鞭毛トリコモナス(T. foetus)は、アメリカ合衆国全土の畜牛の持つ重要な原性動物病原体であり(1)、それは相当数の胎児の死亡と一過性の不妊症を生じさせ、それによって実質的な経済的損失を引き起こす。この寄生体は、畜牛の生殖管に制限されて存在し、一つの形態学上の型ではないが栄養体を有していて、それは生殖管の粘膜表面上に残っていて、妊娠中の動物では起こらないが胎盤を侵す。三鞭毛トリコモナスはまた、胎児の組織である例えば肺、腸の上皮及び肩甲骨下のリンパ節などの組織を侵す(4)。これらの結果はin vitroでの実験から得られる結果(2、3)と同様に、三鞭毛トリコモナスが組織や、そのような組織を続いて寄生体が侵すことを可能にする細胞表面に付着することを示唆している。
発明者らは、三鞭毛トリコモナスが哺乳動物の標的細胞を殺したり赤血球を溶解したりてきること(2)、また三鞭毛トリコモナスに対する表面−反応性の抗体か細胞毒性に対抗して保護作用を持っていて、三鞭毛トリコモナスが標的細胞に付着するのを遮断すること(3)について明らかにしている。さらにこの結果は、三鞭毛トリコモナスの接着性の乏しいクローンに比較すると高い接着性を持っているクローンによる細胞毒性を高めることを示している(3)。これらの結果は、標的に接着する三鞭毛トリコモナスの能力が寄生体に、効率的な細胞毒性の能力を与えることを示している。これらの結果はまた、抗体が損傷からウシ組織を保護することか可能な一つの機構が、接着や何らかの他の接触依存的な細胞毒性の観点を妨害することによるものであることを示唆している。全体の三鞭毛トリコモナスのウエスターンブロットを用いて表面−反応性で阻害性のmAb(32.3B3.4)の反応から得られるデータは、このmAbが約190,000MWのバンドを非−還元性のゲル上で認識し、また還元性のゲル上で140,000及び60,000MWのバンドを認識することを示しており(3)、それは発明者らがTf190と命名した分子である。このように畜牛(5)やマウス(3)における免疫原性の高い分子量の表面分子は、接着や哺乳動物の細胞に対する細胞毒性に関与している。
発明者らは、三鞭毛トリコモナスの哺乳動物細胞への接着性についてTf190に特異的な抗体の効果を評価している。畜牛は親和的に−精製したTf−190を用いて免疫感作し、そしてこれらの畜牛から得られる抗体の抗−接着性の特徴をこの明細書に記載したMIT剪断アッセイを用いて評価する。精製したTf190と反応する別のmAbも同定し、三鞭毛トリコモナスの噛乳動物細胞への接着性についての効果を評価する。別のmAbは精製したTf190に対して調製し、寄生体の付着性と同様に、それらの効果についてスクリーニングする。Tf190に対する抗体及びmAbの特異性は、精製したTf190について行ったドット免疫結合分析法と、三鞭毛トリコモナス及ひTf190の全抽出物のウエスターンブロット法を用いる抗体の反応によって確立した(3)。
実施例11の参照文献
1. BonDurant, R.H., and B.M.Honigberg. 1994. Trichomononads of Veterinary Importance. In,“Parasitic Protozoa”, 2nd edition,J.P.Kreier, ed., 9:111-188.
2. Burgess, D.E., K.F.Knoblock, T.Daugherty and N.P.Robertson.1990. Cytotoxic and hemolytic effects of Tritrichomonas foetus on mammalian cells. Infec. Immun. 58:3627-3632.
3. Burgess, D.E., and C.M.McDonald. 1992. Analysis of adhesion and cytotoxicity of Tritrichomonas foetus towareds mammalian cells with monoclonal antibodies. Infection and Immunity 60:4253-4259.
4. Rhyan, J.C., K.L.Wilson and D.E.Burgess. 1994. Immunochemical detection of T.foetus in formalin-fixed paraffin-embedded sections of bovine placenta and fetal lung. J. Vet. Diagn. Invest.25: 350-355.
5. Corbeil, L.B., J.L.Hodoson, D.W.Jones, R.R.Corbeil, P.R.Widders and L.R.Stephens. 1989. Adherence of Tritrichomonas foetus to bovine vaginal epithelial cells. Inf. Immun.57:2158-2165.
6. Huang, J-C, D.Hanks, W.Kvasnicka, M.Hanks and M.R.Hall.1989. Antigenic relationshipsamong field isolates of Tritrichomonas foetus from cattle. Amer. J. Vet. Res. 50:1064-1068.
実施例12
細菌接着性分子のサブユニット成分の調製のための材料及び方法、並びに診断用試薬、治療用化合物及びワクチン材料として使用するための宿主細胞上のそれらの受容体。
次の方法は、治療用(遮断用)化合物として利用するため、または組換えワクチンに挿入するための細菌接着性分子の隣接するドメインを含む接着性ドメインまたは部位からなるサブユニット成分を合成するために、本発明者らか開発または採用した方法である。ワクチン配合剤に含まれる付着部位内及びその周辺にある多数のペプチドドメインを使用すると、宿主での免疫応答を刺激する抗原性のペプチドを確実に導入することができる。下記に記載した材料及び方法は、接着性の診断薬、治療用ペプチド及び炭水化物、並びに請求の範囲で表示された病原性の微生物の4つのクラスのどれかに対する組換えサブユニットワクチンの開発に適用される。
細菌性の接着システムの検出及び特徴付け
宿主細胞で発現した分子を擬態する病原体の接着性(付着性)分子(PAM)を単離することは、接着性分子のためのリガンドまたはキャピラリー管の反応容器からなる管の表面に被覆された精製されたリガンドを発現する標的細胞を用いるin vitroでの剪断アッセイシステムを発明者らか検出し特徴付けることから始まる。あるタイプの細胞−細胞接着性相互作用について、高い生理的剪断力と低い生理的剪断力のあるところで分析を行うための小さなキャピラリー管の内部表面に種々の接着性基質を形成するための方法は、発明者らによって開発されており、また完成されている(Bargatze, R.らの、1994. J. Immunol. 152: 5814-5825、Jutila, M.らの、1994. J. Immunol.153: 3917-3928、Bargatze, R.らの、1994. J. Exp. Med. 180: 785-792 参照)。
PAM及びそれらのリガンドの検出及び特徴付けでは、in vitroでの分析的な剪断フロー装置(図2参照)が用いられ、それは生理的剪断を擬態している間、固定化基質上を表示するか、または内皮と上皮の細胞もしくは他の標的細胞からなる細胞を表示するリガンドアセンブリのパネルを用いて細菌の接着性相互作用を再生可能なリアル−タイムのモニターを行うとともに定量を行う。このシステムは閉じたキャピラリーループからなり、そこでは液体がぜん動ポンプによって再循環している。このループに注入された細胞の拡散は、血管系の血流を暗示するキャピラリー管の内部表面を被膜する標的細胞の単層と衝突してもたらされる。続いて起こる細菌の細胞と標的細胞またはリガンドを運搬する基質との接着性の相互作用は、専門的なグレードのビデオデータ取得と記録システムを用いて分析する。マッキントッシュコンピュータシステム(Apple Computers,Cupertino, CA)、LG−3ビデオフレーム把持ボード(Scion Corporation,Frederick, MD)、及びイメージ用ソフトウエア(NIH, Bethesda,MD)は、接着性の結果についてリアル−タイムでオフ−ライン形のビデオ分析を行うために注文してあつらえられている。
病原体−標的細胞剪断依存的な相互作用の分析は、下記のように誘導する。白血球/内皮細胞の相互作用は、発明者らが拡張して行った実験であり、それはこれらの研究についてのモデルシステムとして用いられる。
生体内顕微鏡を用いるin vivoでの剪断モデルも、無傷の動物の静脈内で見られる剪断力を模した生理的剪断力の条件で細胞の相互作用を検査するために、発明者らが開発した。注いだFITC−ラベルした微生物と手術して体外に出したマウスのパイエル板または小腸の上皮における内皮の血管との相互作用を観察し、記録することができる。標的細胞への細菌の接着では、安定な接着性アッセイも、確立された細胞系またはどれかの器官系から得られる細胞の組織部分かまたは組織の培養調製物で誘導することができる。
実施例13
固定化した標的細胞または病原体スクリーニングマトリックスの調製
固定化した標的細胞− 新しく単離した因子VIIIであってLDL−受容体陽性のヒトのへその緒の内皮細胞(HUVEC)[内皮細胞成長培地(Clonetecs, EGM)中で培養される]、または組織特異性のアドレッシンを発現することを特殊化した細胞系であるHUVEC、または受容体のcDNAトランスフェクタントを、剪断実験の少なくとも24時間前に滅菌ガラスからなる直径1.36mmのキャピラリー管(Drummond Scientific Broomall, Penn)の内部表面にコンフルエントに達するまで成長させた。アッセイを行う4時間前に、その内皮細胞をIL−1(1ユニット/ml)を用いて処理することによって、E−セレクチン、即ちICAMとVCAMを誘導するためのインターフェロンとインターロイキン−1を誘導させた。
腸の上皮細胞は、ヒトのへその緒またはウシ胎児の小腸を切開し、続いてHanks バランスの塩溶液中でトリプシン−EDTAを用いて処理することによって新しく単離される。また別法として、ヒトの上皮細胞系であるCaco−2(結腸)またはInt−407(空腸/回腸)が用いられる。Caco−2細胞系は、Salmonella typhi(Tartera, C. の、1995. Infect. Immun. 61: 3084-3089参照)、Escherichia coli(Fratamlco, P. らの、1993. J. Med. Micro. 39: 371-381参照)、Aeromonas (Nishikawa, Y. らの、1994. J. Med. Micro. 40:55-61参照)、及びKelbsiella pneumoniae (Favre-Bonte, S. らの、63: 1318-1328 参照)と結合することがわかっている。Caco−2とInt−407細胞は、RPMI1640培地(Sarem, F. らの、1996. Appl. Micro 22: 439-442 参照)で増殖させ、37℃で、5%のCO2/95%の空気よりなる雰囲気中でInt−407については5日間インキュベートした後の最後のコンフルエントに達したところで用いられ、またCaco−2については21日インキュベートした後の分化段階で用いられる。新しく単離した上皮細胞は植え付けて、T−25フラスコでコンフルエントに達するまで増殖させてから収集し、液体窒素中で凍結する。その細胞を、以前よりヒトまたはウシの上皮細胞に特異的であることがわかっていて、95%の上皮細胞よりも多いことがわかっている抗−上皮細胞モノクローナル抗体を用いてそれらの表現型についてテストする。
上皮細胞を解凍し、上皮細胞生長培地内のボロシリケート製のキャピラリー管(内部の直径が1.3mm)に植え付け、コンフルエントに達するまで増殖させる。上皮細胞のコンフルエントに達した単層を含むキャピラリー管を、100mMのPMA、即ちインテグリンアクチベーター(ケモカインズ)を用いて4時間活性化させるか、または活性化しないで閉じた再循環型の剪断ループシステムに導入する。
実施例14
PAMスクリーニングマトリックス− PAMに対する生理的リガンドを表示するマトリックスは、病原性の細菌によって用いられる細胞受容体を結合する既知の炭水化物及び糖タンパク質のカウンター−受容体から調製される。さまざまな巨大分子構造を、PAMに対する病原体を急速にスクリーニングするための診断用の物質として用いる目的で発明者らが設計している。炭水化物−末端のマトリックスを開発するために、本発明者らはSpevakらによって記載された方法(方法1)(Spevak, W. らの、1996. J. Med. Chem. 39: 1018-1020参照)を用いることによって、剪断アッセイシステムでPAMを検出したり同定したりするための炭水化物リガンドを表示する酸性の多価アセンブリを構築している。これらのマトリックスは、キャピラリー管の内壁を被覆するために用いられる支持用の糖タンパク質リガンドを足場とする酸性脂質からなる。炭水化物−末端の脂質マトリックスは、UVを用いて重合化することによって安定化する。もう一つの方法(方法2)は、メタノール中にN−グリコシドまたは糖脂質を希釈する工程、100ngの糖脂質を含む約100μlを採取して、キャピラリー管に入れる工程、及び溶媒を37℃で一晩かけて蒸発させる工程からなる。次にこの管の内腔を、燐酸緩衝化食塩水(PBS)に入れた2%ウシ血清アルブミン(BSA)、200μlを用いて2時間かけて被覆し、BSA溶液て二度洗浄してから最終的に遊離の被膜溶液を流し込む。糖タンパク質−末端のマトリックスを成長させるための方法3は、Ca++及びMg++を加えた洗浄剤を含むHBSS培地(100μg/ml)において糖タンパク質接着性分子構築物を、キャピラリー管内にて37℃で1時間、インキュベートする。次にその管を4℃に15分間冷却し、4℃に維持したHBSS培地を注ぐ(洗浄する)。発明者らは、E−、L−及ひP−セレクチン、ICAM、VCAM、MAdCAM−1並びにβ1及びβ2インテグリンを含む精製した糖タンパク質の拡張パネルを作成した。方法1、2または3を用いることで本発明者らは、剪断アッセイシステムで診断用試薬として利用できる数種の新規なPAMスクリーニングマトリックスを調製した。
剪断アッセイ−
例えばDynal から入手できるような簡単な免疫磁性のビーズは、細胞表面の接着性または可溶性の接着剤(S−接着剤)に指向するmAbを用いて被覆する。このビーズは適当な量のmAbを用いて30分間、4℃で混合して、次に磁性粒子濃縮器中で収集し、5回洗浄してから最終的に緩衝液に懸濁する。微生物の懸濁液は増殖させてから接着性分子の発生を促進することがわかっている培地から収穫し、磁性化されたビーズに接着させるためにホルマリンで固定化し、そして剪断分析を進めるために用いる。そのビーズに付着した細胞はDAPIを用いて染色し、エピ蛍光顕微鏡法を用いて検査することによって付着した細胞の数を測定する。
可溶性接着剤(S−接着剤)、即ち肉汁培養物の上澄みの液体から大量に得られるエキソトキシンの接着性をを検出し特徴付けるために、抗−S−接着剤で被覆した磁性のビーズをS−接着剤を結合させるためにも用い、次の蛍光物質でラベルした抗−S−接着剤が関与するサンドウィッチ法を用いて同定した。ループシステムにヒトまたは動物の上皮細胞(通常は内皮細胞か上皮細胞)を満たしたキャピラリー管を組み入れると、培地としてハンクスバランス塩溶液、即ちHEPES(pH7.0)を用いた場合、フロー−誘導性の剪断は2ダインで流れのピークを持つ脈動する波として確立する。細菌−被膜を施したビーズはPBSに懸濁されていて、注入口から剪断的な流れに拡散させる。細菌−被膜を施したビーズと上皮細胞との相互作用はビデオマイクロスコピーによって観察し、永久記録としてビデオテープに記録したが、それはオフ−ライン形のコンピュータイメージ分析を行うためでもある。ビーズ結合性の細菌の接着性は、接着性の相互反応のタイプ(回転式または据置式)、特徴(一個のビーズか集合したビーズか)、及び接着性の相互作用の数について、それぞれの状態の分析に対して10分間の相互作用の間隔をおいて分析する。
抗−接着剤mAb及びペプチドを用いて接着性相互作用を遮断することについてのすべての研究は、この明細書に記載されたモンタナイムノテック(Montana ImmunoTech(MIT))剪断分析システムで誘導される。
循環ループは、HUVECの相互作用性の表面を通過して白血球か連続的に再循環している間に、種々の特異的な接着性−またはリガンド−ブロック作用のmAbを多数回注入できるようになっている。逆さの顕微鏡ビデオ−捕獲システムは機械化段階で用いられるものであるが、それは標的細胞の単層か完全な長さで残るようにし、続いて行う分析の際の相互作用の領域を高い分解相のコントラストで記録できるようになっている。球に結合させたりまた微生物を単層にしてプランクトン型にしたりといった接着が確立されており、それは少なくとも10分間、ビデオテープを動かしつつ連続的にモニターでき、その間コントロールまたは実験条件は整えられて、維持されている。細胞の相互作用は更に10分間、観察してビデオテープに記録する。活性化された内皮細胞または上皮細胞の回転に乗っている細胞の数は接着性変形体を注入する前と後でモニターし、その記録の個々のフレーム分析を行うことによって測定する。データは、時間当りに見える範囲内に回転している細胞の数として記録される。回転スピード及び回転の挙動性などのパラメーターも分析する。これらの一緒に得られた観察結果は、宿主の組織及び細胞のリガンド構造に対する細菌の接着特異性を調べるための機能を持っていて、それによって発明者らは、生理的条件の下でさまざまな試薬についてテストすることが可能になるとともに、接着性の相互作用を修飾することができるようになる。
実施例16
細菌/標的細胞(リガンド)相互作用に関わる成分または共同者を検出しかつ特徴付ける診断薬としてのPAMスクリーニングマトリックス。
PAMの構造を同定するための診断用プローブ、即ちモノクローナル抗体試薬の開発。PAMの接着性ドメイン(部位)の成分及び/またはそれらのリガンドを含むワクチン、診断用試薬または治療用ペプチドの合成は、剪断システムで検出された接着性分子とは別の領域に指向するモノクローナル抗体(mAb)を開発することと同時に進行する。モノクローナル抗体は、以前の刊行物(Berg, E. L. らの、1993. Nature 366: 695-698 、及びJutila,M.らの、1994. Adv. Pharmacol. 25:235-262)で報告された白血球/内皮細胞相互作用で関与する接着系を検出するとともに、特徴付けるための充分に確率されている手法にしたがって製造する。抗−接着性抗体を産生するハイブリドーマは、接着作用が陽性で手をつけていない無傷の細菌細胞または接着作用が陽性の細菌の細胞壁抽出物(Brauwner, D. L. 及びJ. E.Cutlerの、1986. Infect. Immun. 51: 327-336参照)より調製した精製ずみの接着性物質のいずれかを用いて免疫化したマウスの脾臓−誘導型B−細胞より作られる。モノクローナル抗体は、宿主細胞のリガンド構造、即ち天然に存在する糖タンパク質及び糖脂質の両方に対抗して作られるものであり、それによって細菌性の接着作用を検出するためや遮断するための試薬を開発することができ、また下記に説明したファージディスプレイライブラリーで用いるためのプローブとして機能させることもできる。本発明で用いたたくさんの糖複合体は、商業的に入手可能である。細菌/宿主標的細胞相互作用に対するmAbの特異性及び遮断効果は、上記に説明したin vitroにおける剪断アッセイシステムを用いて分析される。
実施例17
疫感作のプロトコール: Balb/cマウスは生後8−12週間のものを、ハイブリドーマ及び抗体産生のために用いる。一次免疫感作用抗原は、0.5mlのPBSに懸濁した可溶性の接着分子または糖複合体からなる10−20μgに調節し、または5×106個もしくは5×107個のホルマリン−処理した細胞は、CytRx7 TiterMaxJ#R-1に50/50の比率で乳化させる。全ての場合、皮下注入(SC)によるルートをマウスの毒性反応を回避する目的で用いる。免疫化したマウスは14日間飼育し、ELISAによって抗体応答をテストするとともに、無傷の細胞の凝集性をテストする。力価が低い場合には、同じ用量の抗原でそのマウスを追加抗原刺激し、28日間飼育してからテストを行う。この工程を、二つの抗原によってもたらされる目的とする抗体力価になるまで2週間の間隔をおいて繰り返す。
実施例18
ELISAスクリーニングプロトコール: ELISAアッセイは、Costar普遍的電子対共有型表面のアッセイプレートと、細菌性抗原と宿主の結合のための標準的なプロトコールを用いる。このシステムは2段階または3段階の成長系を用いており、そこでは接着性分子がUV架橋によって96ウェルのアッセイプレートに共有結合されている。第1段階の抗−接着性の特異的マウス血清またはハイブリドーマの上澄みの抗体を希釈し、接着性分子を結合させてそのプレートをBSAでブロックしたあとでそのプレートウェルにおいてインキュベートする。非−特異的に結合した第1段階の反応体を除去すべく洗浄した後、ぺルオキシダーゼが結合した抗−マウスの第2段階抗体をそのテストウェルに添加し、インキュベートを行ってから洗浄する。続いて基質をそのウェルに添加して、自動化ELISAプレート読み取り機を用いて連続的に読み取りを行うアッセイを進行させる。目的とする感度が得られない場合には、シグナルを増幅させるために第3段階を行う。
実施例19
ハイブリドーマ融合プロトコール: 抗−接着性ハイブリドーマをサブクローニングし、ハイブリドーマ細胞数が充分になると即座に選別する。サブクローニングは、AHAT@培地で限定的に希釈することによって96−ウェル中で行う。mAb−陽性のサブクローンをうまくELISAスクリーニングし、抗−接着性mAbを大量に製造するために、そのハイブリドーマを血清を含まない培地に適合させる。
実施例20
細菌性の接着分子及び宿主のリガンドに対して向かうモノクローナル抗体(mAb)は診断用試薬として用いることができ、またある場合には治療用薬剤として用いることができる。例えば本発明者らは、疾患の兆候が現れる前にカンジダアルビカンスでうまく感染させたマウスの血清サンプル中に、影響を及ぼす細菌の接着性分子(接着剤)が非常にゆっくりと濃縮されることを特異的mAbによって検出できることを明らかにした。さらに発明者らは、食肉のサンプル中に含まれるベロ毒素性の大腸菌またはそのベロ毒素を検出するために、その大腸菌の細胞表面及びベロ毒素接着性ドメインに対して向かうmAbの効果を証明した。
実施例21
接着性エピトープのペプチドドメインの同定
ランダムファージ−ディスプレイライブラリーを用いてマッピングするエピトープは、前核細胞または真核細胞の膜における複合の局所解剖学上部位に入り込んでいるキーとなる分子構造を調べるために用いられる。精製した糖タンパク質もしくは糖脂質に対して、または接着性−陽性の微生物に対して製造したモノクローナル抗体は、新規なベクターM13KBst上に表示されるノナペプチドライブラリー(J404)を探索するために用いられる(Burritt,J.B.及びC.W.Bond.J.Biochem.238:1-13 参照)。mAbによって結合したエピトープを運搬するファージの親和性精製法は、次の様に行った。即ち、ファージのノナペプチドディスプレイライブラリーから得られる1×1022個のファージを、4mgの抗−接着性ブロッキングmAbで複合化した1.0mIのセファロースビーズに結合させる。このビーズを4℃で16時間、緩和に反転させてファージと混合する。続いてこの混合物を5mlのプラスチックカラムバレル(Evergreen)にかけ、結合していないファージを50mlのファージ緩衝液(50mMのトリス−HC1、pH7.5、150mMのNaCl、0.5%のトウィーン20(v/v)、1mg/mlのBSA)を用いて洗浄することによって除去する。結合したファージは2.0mlの溶出用緩衝液(0.1Mのグリシン、pH2.2)を用いてカラムから溶出し、その溶出液のpHを2Mのトリズマ塩基を4滴入れることで直ちに中和する。ファージの力価(ノナペプチドライブラリー)は、標準法にしたがってプラークアッセイ法によってそれぞれのカラムの溶出物について測定する。このカラムマトリックスは、第2回目、第3回目の親和性精製法で再利用するために、10mlのPBS、pH7.0で洗浄し、続いて0.02%のアジ化ナトリウムを含む3.0mlのPBSを用いてさらに洗浄してから保存する。このカラムは次の親和性精製法で用いるときまで4℃で保存し、再利用するにあたっては、増幅させたファージと混合する前に20mlのファージ用緩衝液を用いてすすぐことによって調製する。抗体−特異性の選別法でのコントロールとしてビーズに抗体を結合させていないカラムを調製し、ファージの親和性精製法のすべてのステップをこのコントロールカラムについて行い、得られたファージのサンプルを配列決定することによって、接着性ブロッキングmAbによって認識されるペプチド配列を決定するデータを提供することができる。
in vivo で標的細胞への微生物の接着をブロックすることのできる高い親和性のペプチドは、感染性の疾患を治療したり抑制したりするための治療様薬物として用いることができる。これらのペプチドはまた、PAMに対して宿主によって産生される抗−接着性の抗体を検出するための診断用試薬として用いることもできる。
実施例22
ワクチンの調製: 生きたベクター供給システムに挿入するためのDNAの合成
接着性ペプチドを表示する親和的に精製したファージから得られるDNAは、感染したK91(E.coli)細胞から抽出し、CsCl傾斜法で精製する。接着性のペプチド−エンコードしたファージDNAの領域は、BstXIを用いて開裂させたときにベクターDNAから31−塩基対のフラグメントを除去できるような制限部位を含んでいる。次に合成DNAの挿入物を、Cwila,S.ら(Proc.Nat.Acad.Sci.87:6378-6382参照)によって記載された方法にしたがって製造する。サブユニットの接着性ドメインをエンコードするDNAを運搬するasd安定化プラスミドを構築し、Wu,S.ら(Infect.Immun.63:4933-4938)によって記載されたような減毒したネズミチフス菌株(H683)に挿入する。別法として、腸チフス菌(Salmonella typhic)または志賀赤痢菌株も接着性エピトープを発現させるために操作することができる。接着性エピトープを発現するサルモネラベクターは経口投与され、全身性のTh1及びTh2免疫応答はもちろんのこと、強力な粘液も導き出す。
宿主の免疫区画の誘導部位に抗原を供給する別の方法として、グラム−陽性の細菌の表面タンパク質の係留機構(Fischetti,V.A.1996.ASM News 62:405-410)またはアデノウイルスベクターを用いて気管内遺伝子供給法(Van Ginkel,F.W.らの、1995.Hum.Gene.Ther.6:895-903)が開発されている。
細菌の接着性分子を検出するとともに特徴付けを行い、そして複製する本発明の視覚的に完成された方法における最終的な産物は、細菌の接着分子のトポロジーを反映しているペプチドドメインを発現させたり表示したりする広い範囲で異なるサブユニットの組換え経口ワクチンである。生きたベクターの供給システムは、例えばWuらによって記載されているように、適当なペプチドエピトープを発現させることによって、宿主に入って感染させるための接着性機構を用いるどの病原性微生物に対しても構築することができる。
病原性の微生物が、細胞−細胞伝達ネットワークを覆したり、入り込んだりすることによって宿主を感染する手段として、接着性及び信号系が必要であり、それを利用していることは本発明の研究から明らかである。宿主細胞との同一性や侵略的な細菌の侵入経路、即ちアドレスの認識及び信号の変換などは、多くの細菌性接着と信号伝達系が、宿主系の機能及び分子を真似て進化した産物であることを意味する。病原性の微生物の感染経路は、宿主−炭化水素を結合するタンパク質受容体及びタンパク質を結合するタンパク質受容体の標的細胞との少なくとも二つのタイプの受容体−リガンド相互作用が関与する。宿主細胞を用いると、糖タンパク質と炭水化物リガンドとの一次の相互作用はアドレス認識の特異性をコントロールするために作用するが、受容体/リガンドペアのしっかりとした結合は形成しない。タンパク質受容体とタンパク質/ペプチドリガンドが関与する二次の相互作用は、しっかりとした結合するのを助長するとともに、宿主細胞の膜上やサイトソル中での信号伝達経路の増大を引き起こす。この原理は、認識がタンパク質(セレクチン)−炭水化物(シアリルLeX)結合によって仲介される場合に好中球が必要とされることで証明されているが、ただししっかりと結合していて、平らになっている場合はタンパク質−タンパク質(インテグリン/リガンド)結合の結果である。同様に多くの細菌や細菌性の毒素、例えば腸内出血性の大腸菌の志賀毒素様毒素などは、タンパク質受容体−炭水化物リガンド相互作用を経て内皮細胞上の分子アドレスを認識し、そして細胞内機能の破壊につながるタンパク質−タンパク質相互作用を経て信号伝達経路を開始する(St.Hilareらの、1994.Biochem.33:14452-14463参照)。病原性の細菌の最も特徴的な接着システムは、細菌と宿主細胞との間で起こるタンパク質受容体−炭水化物リガンド相互作用からなるシステムである(Mirelman,D.及びI.Ofek.1996.In.Microbial Lectins and Agglutinis,p.1-19.John Wiley and Sons.N.Y.参照)。それぞれのタイプの受容体−リガンドペアによって仲介される細菌−宿主細胞接着についての多くの重要な実施例が下記に列挙されている。
炎症性細胞(白血球及び内皮細胞)系の接着性分子(セクレチン)のような多くの細菌性付着分子は、レクチン様構造、即ち標的細胞上の炭水化物を認識することによって接着性の相互作用を仲介する炭水化物結合性タンパク質(CBP)として定義される(参照:Microbial Lectins and Agglutinis.1996.John Wiley及びSons,N.Y.、及びJutila,M.A.らの、1989.In:Leukocyte Adhesion,Ediited by Springer,et al Springer-Verlag,p.211-219)。これらの付着分子は化学的には糖タンパク質として定義され、無数の生物学上の作用をコントロールする。細菌のCBP受容体は炎症性細胞上のセレクチンに似ており、それは細胞−細胞相互作用において認識のための分子として機能する。BCP受容体はモノまたはオリゴサッカライドと可逆的にそして共有結合で結合するが、それは溶液中で遊離していようが細胞表面上で遊離していようが簡単な結合であると同時に複合化した結合でもある。
タンパク質を結合するタンパク質受容体
タンパク質リガンドに結合するために細菌によって用いられるタンパク質受容休の配列は、全てのクラスの病原性微生物で見いだすことができる。通常タンパク質受容体とタンパク質/ペプチド(PBP)相互作用は、宿主の標的細胞に病原体がしっかりと結合するのを促進する。このような結合は、真核細胞のアクチンネットワークにおいて別法を作り出す信号経路の活性化を導き出したり増大させたりする。タンパク質−タンパク質接着性の相関作用には二つのタイプまたは二つの細胞部位があることが明らかであり、一つ目は細菌−標的細胞の界面で起こり、二つ目は、病原体によって分泌されるタンパク質と宿主細胞のアクチンネットワーク(GTP結合性タンパク質、−Rho、Rab、Arf、Ran、Ras、Rac、Cd−42、MAPKカスケード、及びビヒクルと結合するためのt−SNARE、v−SNAREモデル)のタンパク質との相互作用によって促進される信号伝達経路である。これらのシステムの多くの場合において病原体が、宿主の接着性分子やそのリガンドを擬態したり侵害したりすることが下記の特定の実施例で示されているように記録された。
PBPクラスの受容体を発現するヒトの細菌性病原体
細胞−細胞相互作用及び細胞−細胞外マトリックス相互作用で機能するインテグリンファミリー及びそれらのタンパク質/ペプチドリガンドにおいて見られる宿主の接着性分子は、インテグリンまたはそれらのタンパク質リガンドに細菌性同一性があるために破壊されるということがわかった。宿主では、β1インテグリン(VLAファミリー)は細胞外マトリックス成分であるフィブロネクチン、フィブリノーゲン、ラミニン及びコラーゲンに結合し、そしてそれらは多くの非−出血性の細胞型上及び白血球型上で発現する。β2サブファミリーのものは、それらの発現が白血球に限定されるため、白血球インテグリンともよく言われる。LFA−1、Mac−1及びgp150.95β2インテグリンは、骨髄細胞が他の細胞や、補体及びクロッティングカスケードを活性化する際に不溶化されてしまうリガンドに接着する際に重要である。インテグリンの構造的なドメインは、配列Arg−Gly−Asp(RGD)、全てのインテグリンではないが数個のインテグリンについてのリガンド認識モチーフを含むペプチドに架橋することによって結合するリガンドと関連していた。宿主のインテグリンファミリーと免疫グロブリンのスーパーファミリーからなる接着性分子に関する分子上及び機能上の擬態が観察されている(Hoepelman,A.I.M.及びE.I.Tuomanen.1992..Infect.Immunity.60:1729-1733 参照)。宿主の細胞外マトリックスタンパク質の擬態を開発した他の病原体は、それらの細胞表面上にRGD配列を表示し、その結果容易にインテグリンに結合する。
細胞外タンパク質−タンパク質相互作用
病原性微生物は、真核細胞の細胞骨格を調節する際に関与する分子を機能的に擬態する一つの配列のタンパク質分子を必要としている。これらのいわゆる有害なタンパク質は、例えば宿主細胞のアクチンネットワークの機能を導く少量のグアノシントリホスフェート(GTP)−結合性タンパク質(−Rho、Ras、Rac、Cdc42など)を含む信号発生カスケードで妨害する。有害なタンパク質はGTP−結合性タンパク質に非常に特異的な様式で結合するらしく、微生物のためのアクチンネットワークの配列換えを促進する。
他のタンパク質−タンパク質相互作用
免疫性及び炎症を調節するためには、間違いなく何百もの異なるサイトカインと何ダースものサイトカイン−活性化二次−メッセンジャ−系がある。サイトカインと細胞との相互作用は主としてタンパク質−タンパク質/ペプチド接着の成り行きであり、またその相互作用の多くは細菌の相同性によって覆されたり、あるいは穿刺されたりする。
サイトカインとして初めは分類されたケモカインは、それらの白血球−化学誘引物質活性が最も知られている小さな前−炎症性のペプチドである。それらのリガンドに似た受容体は、構造的に及び機能的に関連するタンパク質からなる一つのファミリーを形成する。それらは、アミノ酸配列の相同性で定義することのできるヘプタヘリカル、ロドプシン−様、G−タンパク質−カップルさせた受容体からなるスーパーファミリーの一員である。白血球ケモカイン、IL−8、及びマクロファージ炎症性タンパク質1α(MIP−1α)/RANTES受容体に対するタイプA及びB受容体は、配列が関連していて、二つのヘルペスウイルス産物に結合するケモカインである。
発明者らは、経口投与または鼻腔内投与を行うようにデザインされた組換えサブユニットワクチンを開発した。経口のワクチンは、Wuらによって記載された方法にしたがって製造する。なおこの方法では、微生物の表面にペプチドエピトープを表示したりまたは発現させたりする生きたベクター(ネズミチフス菌)系を用いることによって、可能性のある粘膜及び全身性の免疫応答を産生する。また、本発明者らのうちの一人によって同時に開発されたもう一つのベクタ一系は、重要なエピトープを呼吸器管上の粘膜免疫区画に供給するためのアデリオロウイルスベクター系を用いている。同様に他のウイルス、ファージ、細菌または重合性のべクターを用いることかできる。
哺乳動物のセクレチンはワクチンとして、またはワクチンに入れて用いないが、それはそれらのセクレチンが宿主起源の単離物であり、したがって非−免疫原性のためである。セクレチンと同様の様式で炭水化物リガンドを結合する細菌の接着性部位のペプチドドメインのみ、またはその機能的なアナログが、ワクチン調製物として役に立つ。ワクチン配合剤に組み入れた細菌のペプチドドメインは、充分な免疫原性を持っていて免疫応答を引き起こすことができる。
さらに本発明のワクチン及びペプチド化合物は、単位用量づつ投与できる形態、例えば錠剤、カプセル剤、丸剤、粉末剤、顆粒剤、坐剤、滅菌性の非経口溶液剤または懸濁剤、滅菌性の非経口性でない溶液剤または懸濁剤、経口の溶液剤または懸濁剤、水中油型または油中水型の乳濁剤などの形態で、適切な場合には適当な量の活性な成分を含ませてヒト及び動物に全身性投与する際の薬学上組成物において有用である。
固体状または液体状のいずれかで単位用量づつ投与する形態によって経口投与するためには、本発明のワクチン及びペプチドを用いて調製することができる。ワクチン及びペプチドは、活性な成分をキャリアまたはビヒクルとともに入れてなる薬学上組成物で有用であり、その組成物中、約1−20重量%、好ましくは約5−15重量%で含まれている。
液体状または固体状のいずれかからなる単位用量剤形は、経口投与のために容易に作ることができる。例えばこのワクチンを、リン酸二カルシウム、マグネシウムアルミニウムケイ酸塩、ステアリン酸マグネシウム、硫酸カルシウム、スターチ、タルク、ラクトース、アカシア、メチルセルロース、または薬学上の賦形剤もしくはキャリアとして機能的に同じ物質のなどの便利な成分と共に混合してもよい。持続的に放出する剤形も任意で用いることができる。カプセル剤は、この化合物を不活性な薬学上の希釈剤とともに混合し、その混合物を適当な大きさの硬いゼラチンカプセル剤に入れることによって調剤することができる。ソフトカプセルが望ましいのであれば、この化合物を受容可能な植物性オイル、軽油、または他の不活性なオイルとともにスラリー状にしたものを機械によってゼラチンカプセルに入れてカプセル化してもよい。
懸濁剤、シロップ剤及びエリキシル剤は、液体状の単位用量形態で経口投与する際に役立つことができる。オイルを含む液状製剤は、オイル可溶性の形態のものに対して有用であろう。コーンオイル、ピーナッツオイルまたはサフラワーオイルのような植物性オイルは、例えば風味料、甘味料及び保存料と一緒にして受容可能な液状調製剤を製造する。シロップ剤を液状の単位用量製剤にするため、界面活性剤を水に添加してもよい。水−アルコール性の薬学的調製剤は、例えば砂糖、サッカライドまたは生物の甘味料のような受容可能な甘味料や風味料を添加してエリキシル剤の形態にして用いることもできる。非経口投与及び坐剤投与のための薬学的組成物も、この技術における標準的な手法を用いて入手することが可能である。
上記のペプチドまたはワクチン、及び他の薬物は、単独で容器に入れてもよいし、または薬学的なキャリアやアジュバントと組み合わせた形態にしてもよい。本発明の目的で受容可能な薬学的なキャリアは、薬物や宿主、それに薬物供給装置を構成する材料に対して悪い影響を与えないようなこの技術で既知のキャリアである。好ましい薬学的キャリアには、滅菌水、食塩水、デキストロース、水か食塩水に入れたデキストロース、ひまし油1モルあたり約30−約35モルの酸化エチレンを組み合わせたひまし油と酸化エチレンの縮合生成物、水性酸、低級のアルカノール、コーンオイル、ピーナッツオイル、胡麻油などの油、例えば脂肪酸のモノ−グリセライドやジ−グリセライド、または例えばレシチンなどのホスファタイドのような乳化剤とともに入れた油、グリコール、ポリアルキレングリコール、例えばカルボキシメチルセルロースのナトリウム塩、アルギン酸ナトリウム、ポリ(ビニルピロリドン)などの懸濁剤が単独で、または例えばレシチン、ポリオキシエチレンステアレートなどの適当な分散剤とともに存在する水性媒体が含まれる。またこのキャリアは、保存料、安定化剤、湿潤剤、乳化剤などのアジュバントを、本発明の浸透性促進剤とともに含んでいてもよい。ワクチンの供給系には、ファージ(例えばM13)、生きたベクター、サルモネラ菌種、赤痢菌種、アデノウイルス、リポソーム、カウピーモザイクウイルス(cowpea mosanic virus)、アルギネートゲル、ペプチド複合体、適当なアジュバント系及び糖複合体も含まれる。これらの供給系はすべて、それらの表面に発現するタンパク質または活性な分子を持っている。
哺乳動物に対する有効量は、治療を行うべき患者の年齢、体重、活動レベルや症状などのファクターによって変わるであろう。通常は本発明にかかる化合物の有効ワクチン用量は、投与した場合には約10−500mgである。ワクチン接種は、Remington's Pharmaceutical Sciences,18th Ed.,Wiley Publicatlons,1990 における前述したプロトコールと同じでなくてはならない。なお、この文献はその全体が参照文献としてこの明細書に組み入れられる。
参照文献
1. Tuomanen,E. 1992. Subversion of leukocyte adhesion systems by respiratory pathogens. ASM News 59:292-296.
2. Falkow,S.,1991,Bacterial entry into eukaryotic cells.Cell 65:1099-1102.
3. Ishibashi,Y.,Claus,S.,and D.A.Relman,1994. Bordetella pertuss isfilamentous hemagglutinin interacts with a leukocyte signal transduction complex and stimulates bacterial adherence to monocyte CR3 (CD11b/CD18). J. Exp. Med. 180:1225-1233.
4. Jutila, M.A.,Lewinsohn,D.M.Berg., E.L.and E.C.Butcher.1989. Homing receptors in lymphocyte,monocyte and neutrophil interaction with endotheliun. In: Leukocyte Adhesion,edited by Springer,et al. New York:Springer-Verlag,p.211-219.
5. Lasky,L.A. 1992. Selectins: Interpreters of cell-specific carbohydrate information during inflammation. Science. 258:964-969.
6. Jutila, M.A. 1994. Selectins in leukocyte extravasation:function of a common epitope on L-and E-selectin. Adv. Pharmacol.25:235-262.
7. Smith,C.W. 1993. Endothelial adhesion molecules and their role in inflammation. Can. J. Physiol. Pharmacol. 71:76-87.
8. Bevilacqua,M..P. and R.M. Nelson. 1993,Selectins. J.Clin. Invest. 91:379-387.
9. Wolber,F.,R.Craig,O.Abassi,J.Ballew,R.Lobb and L.Stoolman,1993. VLA-4mediates lymphocyte bindig to endothelium under shear. FASEB 7:A3704. (Abstract).
10. Berg,E.L.,L.M.McEvoy,C.Berlin,R.F.Bargatze and E.C.Butcher. 1993. L-selectin mediated lymphocyte rolling on MAdCAM-1. Nature 366:695-698. venules. J. Exp. Med. 178:367-372.
11. Jutila,M.. 1994. Selectins in leukocyte extravasation:function of a common epitope on L−and E-selectin. Adv. Pharmacol.25:235-262.
12. Lawrence,M.B.and T.A.springer. 1993. Neutrophil s roll on E-selectin. J. Immunol. 151:6338-6346.
13. Smith, C.W. 1993. Endothelial adhesion molecules and their role in inflammation. Can.J. Physiol. Pharmacol.71:76-87.
14. Lawrence, M.B.and T.A.Springer. 1991. Leukocytes roll on a selectin at physiologic flow rates:Distinction from and prerequisite for adhesion throug hintegrins. Cell 65:859-873.
15. Butcher,E.C. 1986. The regulation of lymphocyte traffice.Curr. Top. Microbiol. Immunol. 128:85.
16. Ley, K.P.Gaehtgens, C.Fennie,M.S.Singer, L.A.Lasky and S.D.Rosen,1991. Lectin−like adhesion molecule-1 mediates leukocyte rolling in mesenteric venules in vivo. Blood 77:2552-2555.
17. von Andrian,U.H.,J.D.Chambers,E.L.Berg,S.A.Michie,D.A.Brown, D.Karolak,L.Ramezani,E.M.Berge, K.E.Arfors and E.C.Butcher. 1993. L-selectin mediates neutrophil rolling n inflamed venules through sialyl Lewis-dependent and independent recognition pathways, Blood 82:182-191.
18. Abbassi,O., T.K.Kishomoto, C.L.Lane, L.V.Mc lntyre and C.W.Smith,1993. Endothelial-leukocyte adhesion molecule-1 supports neutrophil rolling in vitro under conditions of flow.Submitted.
19. Bargatze,R.,S.Kurk,G.Watts,T.K.Kishimoto,C.A.Speer,and M.A.Jutila. 1994. In vivo and in vitro functional examination of a conserved epitope of L-and E-selectin crucial for leukocyte-endothelial cell interactions. J. Immunol., 152:5814.
20. Ahuja,S.,J.L.Gao and P.M.Murphy,1994. Chemokine receptors and molecular mimicry. Immunol. Today. 15:281-287
21. St.Hilaire,P.M.,M.K.Boyd,and E.J.Toone. 1994. Interaction of the Shiga-like toxin Type 1 B-subunit with its carbohydrate receptor. Biochem. 33:14452-14463.
22. Keusch, G.T., A.Donohue-Rolfe,and M.Jacewicz. 1986.Microbial lectins and agglutinins: Properties and biological activity. p.271-295. John Wiley and sons,NY.
23. Cossar, P.,P.Boquet, S.Normark,and R.Rappuoli. 1996.Cellular Microbiology Emerging. Science 271:315-316.
24. Baringa,M. 1996. Ashared strategy for virulence. Science 272:1261-1263.
25. Ishibashi,U.,Claus,S.,and Re1man,D.A. 1994. Bortella pertussis filamentous hemagglutinin interacts with a leukocyte signal transduction complex and Stimulates bacterial adherence to monocyte CR3(CD11b/CD18). J. Exp. Med. 180(4):1225.
26. Kimura, A., Mountzouros, K.T/, Relman, D.A., Falkow,s.,and Cowel1,J.L. 1990. Bordetella pertussis filamentous hemagglutinin:evalution as a protective autigen and colonizing factor in a mouse respiratory infection model. Infect. Immun.58(1):7.
27. Falanga,P.B.,and Butcher,E.C. 1991. Late treatment with anti-LFA-1(CD11a) antibody prevents cerebral malaria in a mouse model. Eur. J. Immunol. 21:2259.
28. Ockenhouse,C.F.,et al. 1992. Human vascular endothelial cell adhesion receptors for Plasmodium falciparum−infected erythrocytes:Roles for endothelial leukocytea dhesion molecule 1 and vascular cell adhesion molecule 1. J. Exp. Med. 176:1183.
29. Cutler, J.E.,D.L.Brawner,K.C.Hazen, and M.A.Jutila.1990. Characteristics of Candida albicans adherence to mouce tissue. Infect. Immun. 58:1902-1908.
30. Klotz,S.A.,and Smith,R.L. 1991. A fibernectin receptor on Candida albicans mediates adherence of the fungus to extracellular matrix. JID. 163:604.
31. Relman,D.,E.Tuomanen,S.Falkow,D.T.Golenbock,K.Saukonen,and S.D.Wright,1990. Recognition of a bacterial adhesin by an eukaryotic integrin:CR3 on human macrophages binds filamentous hemagglutinin of Bordetella lapertussis. Cell 61:1375-1382.
32. Saukonen,K.,W.N.Burnette,V.Mar,H.R. Masure,and E.Tuomanen.1992. Pertussis toxin has eukaryotic-like carbohydrate recognition domain. Proc. Nmatl. Acad. Sci. 89:118-122.
33. van't Wout,J.W.N.Burnette,V. Mar,H.Sato,S.D.Wright and E.Tuomanen. 1992. Cooperative microbial adhesins: the Boligomer of pertussis toxin triggers enhanced FHA-mediated entry of Bordetella pertussis into human macrophages. Infect.Immun. 60:3303-3308.
34. Whittan,T.S.,I.K.Wachsmuth,and R.A.Wilson. 1988. Genetic evidence of conal descent of Escherichia coli 0157: H7 associated with hemorrhagic colitis and hemolytic uremic syndrome. J.Infect. Dis. 157:1124-1133.
35. Karmalim,M.A.,M.Petric,C.Lim,and J.Hockin. 1985.The associated between idiopathic hemolytic uremic syndrome and infection by vertoxin-producing Escherichia coli. J.Infect. Dis. 151:775-782.
36. Sherman,P.,R.Soni,M.Petric,and M.karmali. 1987. Surface properties of the vero cytotoxin-producing Escherichia coli 0157:H7. Infect. Immun. 55:1825-1829.
37. Karch,H.J. Heesemann, R.Laufs, A.D.O'Brien, C.O.Tacket,and MM.Levine. 1987. A plasmid of enterohemorrhagic Escherichia coli 0157:H7 is required for expression of a new fimbrial antigen and for adhesion to epithelial cells. Infect. Immun. 55:455-461.
38. Dytoc.,M.T.,A.Ismaili,D.J.Philpott,R.Soni,J.L.Brunton,and P.M.Sherman. 1994. Distinct binding properties ofe aeA-negative veroctytoxin producing Escherichia coli of serotype 0113:H21. Infect. Immun. 62: 3494-3505.
39. Dytoc,M.B.Gold,M.Louie,M. Huesca, L.Fedorko, S.Crow,C.Lingwood, J.BruntonandP.Sherman. 1993. Comparison of Helicobacter Pylori and attaching-effacing Escherichia coli adhesion to eukaryotic cells in vitro. Infect. Immun. 61:448-456.
40. Louie, M., J.D.Azavedo, R.Clarke, A.Borczyk,H.Lior,M.Richter, and J.Brunton. 1994. Sequenceh eterogeneity of the eae gene and detection of verotoxin-producing Escherichia coli using a serotype-specific primners. Epidemiol. Infect. 112:449-461.
41. Donnenberg, M.S.and J.B.Kaper. 1992. Enteropathogenic Eshcerichiacoli. Infect. Immun. 60:3953-3961.
42. Donnenberg,M.S.,J.A.Nataro and J.B.Kaper. 1992. A plasmid -encoded type IV fimbrial gene of enteropathogenic. Escherichia coil associated with localized adherence. Mol. Microbio. 6:3427-3437.
43. Yu,J.,and J.B.Kaper. 1992. Cloning and characterization of the eae gene of enterohemorrhagic Escherichia coli 0157:H7.Mol. Microbiol. 6:411−417.
44. TranVanZNheiu,G.,andR.R.Isberg. 1991.TheYersinia pseudotub erculosis invasin protein and human fibronectin bind to mutually exclusive sites on the alpha 5 betal integrin receptor.J. Biol. Chem. 266:24367-24375.
45. Newell,D.G. 1991. Virulence factors of Helicobactor pylori. Scand. J. Gastroenterol. Suppl. 187:31-38・
46. Boren,T.S.Normark and P.Falk,1994. Helicobactor pylori:molecular basis for host recognition and bacterial adherence.Trends Microbiol. 2:221-228.
47. Lindberg,AA. et al.,1987. Indentification of the carbohydrate receptor for Shiga toxin produced by Shigella dysenteria type 1. Biochem. 262: 1779-1785.
48. Finne,J. 1985. Polysialic acid a glycoprotein carbohydrate involved in neural adhesion and bacterial meningitis. TIBS.
49. Tjia,K.F.,J.P.Putten,E.Pels,and H.C.Zanen. The interaction between Neisseria gonorrhoeae and the human cornea in organ culture. Graefes Arch. Clin. Exp. Ophthalmol.1988. 226:341-345.
50. Weel,J.F.,C.T.Hopman and J.P.van Putten. In situ expression of Neisseria gonorrhoeae opacity proteins in infected epithelial cells;apparent role of Opa proteins in celluar invasion. J.Exp. Med. 1991. 174:705-715.
51. Soteriadou,K.P.,M.S.Remoundos,M.C.Katsikas,A.K.Tzinia,V.Tsikaris, C. Sakarellos, S.J.Tzartos. 1992. The Ser-arg-tyr-Asp region of the major surface glycoprotein of Leish mimics the arg-gly-asp-ser cell attachment region of fibronectin.J. Biol. Chem. 267:1398-13985.
52. Patti,J.M.,B.L.Allen,M.J.McGavin and M.Hook. 1994.MSCRAMM-Mediated Adherence of Microorganisms to Host Tissues.Annu. Rev. Micro. 48:585-616.
53. Kaplan,B.S.,T.G.C1eary and T.G.Obrig. 1990. Recent advances in understanding the pathogenesis of the hemolytic uremicsyndromes. Pediatr. Nephrol. 4:276-283.
54. Wu,S.,D.W.Pascual, J.L.VanCott, J.R.McGhee,D.R.Maneval,Jr., M.M.Levine, a M.Hone. 1995. Immune responses to novel Escherichia coli and Salmonella typhimuriu vectors that express colonization factor antigen I (CFA/1) of enterotoxigenic E.coli in the absence of the CFA/1 positive regulator cfaR. Infect.Immunity. 63:4933-4938.
55. Pascual. et al. 1996. Mucosal Immunity: molecular and cellular aspects of immune protection to enteric infections in: Enteric infections and immune responses. Eds. Paradise,Bendinelli and Friedman. p. 15-35. Plenum Press, NY. 56.Briggs, J.B.,Y.Oda, J.H.Gilbert, M.E.Schaefer,and B.A.Macher.19
95. Peptides inhibit selectin-mediated adhesion in vitro and neutrophil influx into inflammatory sites in vivo. Glycobiol.5(6):583-588.
57. Spevak,W.,C.Foxall,D.H.Charych,F.Dasgupta,and J.O.Nagy. 1996. Carbohydrates in acid icmultivalent assembly:Nanomolar P-selectin inhibitors. J. Med. Chem. 39: 1018-
58. Burritt,J. B.,and C.W.Bond. 1996.Filamentous phage display of oligopeptide libraries. A Biochem. 238:1-13.
上記の説明及び実施例の目的は本発明のいくつかの態様を例示するためのものであって、何らかの限定を意味しているのではない。本発明の組成物及び方法に、本発明の精神及び範囲を逸脱することなく修飾や変形を加えることができることは当業者には明らかであろう。この明細書で引用したすべての特許文献及び刊行物は、その全体が参照文献としてこの明細書に組み入れられる。
Claims (53)
- 宿主細胞上の分子アドレスに結合することかできる1種又はそれ以上の付着分子又はその断片から成り、その結合によって、1つ又はそれ以上の信号伝達路を誘発し、かつ選択された病原体及び/又はその毒素が宿主組織を通行することを可能とすることができることを特徴とする予防及び治療ワクチン。
- 前記付着分子が、タンパク質、糖タンパク質、糖脂質及び炭水化物から成る群から選択される原核又は真核接着分子である請求項1記載のワクチン。
- 前記宿主細胞が、白血球、内皮細胞、上皮細胞及び神経系の細胞から成る群から選択される細胞である請求項1記載のワクチン。
- 白血球、内皮細胞、上皮細胞及び神経系の細胞から成る群から選択される宿主細胞の宿主細胞接着性タンパク質、糖タンパク質、レクチン又は炭水化物を模倣する微生物付着分子から成るワクチンであって、前記付着分子が、標的細胞上のリガンドに結合することを特徴とするワクチン。
- 前記微生物付着分子が、C−型レクチンである請求項4記載のワクチン。
- 前記レクチン付着分子が、セレクチン又はその機能的同等物である請求項4記載のワクチン。
- 前記セレクチン分子が、E−、L−及びP−セレクチンから成る群から選択される請求項4記載のワクチン。
- 白血球、内皮細胞、上皮細胞及び神経系の細胞から成る群から選択される宿主細胞の宿主細胞接着性糖タンパク質を模倣する微生物付着分子から成るワクチンであって、前記付着分子が、標的細胞上のタンパク質又は糖タンパク質リガンドに結合することを特徴とするワクチン。
- 細胞上の炭水化物又はオリゴペプチドリガンド又は組織又は器官の細胞の細胞外マトリックスを模倣する微生物付着分子から成るワクチンであって、前記付着分子が、宿主細胞上の接着分子にに結合することを特徴とするワクチン。
- 前記微生物付着分子が、インテグリン又はインテグリン分子と機能的に同等の分子である請求項8記載のワクチン。
- 前記インテグリン分子が、VLA、Leucam及び細胞接着(cytoadhesion)インテグリンから成る群から選択される請求項10記載のワクチン。
- 前記インテグリン分子が、VLA−1、2、3、4、5及び6、Mac−1、LFA−1 gp150.95、CD41a、CD49及びCD51から成る群から選択される請求項10記載のワクチン。
- 前記微生物付着分子が、免疫グロブリンスーパーファミリーの一員又は免疫グロブリンスーパーファミリー分子と機能的に同等の分子である請求項8記載のワクチン。
- 前記免疫グロブリンスーパーファミリー分子が、ICAM−1、2又は3、VCAM、NCAM及びPECAMから成る群から選択される請求項13記載のワクチン。
- 前記微生物付着分子が、N−アセチルノイラミン酸、シアル酸、N−アセチルグルコサミン、N−アセチルガラクトサミン、グルコサミン、ガラクトサミン、ガラクトース、マンノース、フコース及びラクトースの残基から成る群から選択される炭水化物リガンドに結合する請求項4記載のワクチン。
- 前記微生物付着分子が、サイトカインファミリーの一員であり、白血球、内皮細胞、上皮細胞及び神経系細胞から成る群から選択される細胞上のリガンドに結合する請求項1記載のワクチン。
- 前記微生物付着分子が、ケモカインファミリーの一員であり、白血球、内皮細胞、上皮細胞及び神経系細胞から成る群から選択される細胞上のリガンドに結合する請求項1記載のワクチン。
- 前記微生物付着分子が、白血球、内皮細胞、上皮細胞及び神経系細胞から成る群から選択される真核細胞中の細胞グアノシントリホスファターゼ(GTP)結合タンパク質に結合する請求項1記載のワクチン。
- 前記グアノシントリホスファターゼ結合タンパク質分子が、Rho、Ras、Rac、Cdc42、Rab、Ran及びArfから成る群から選択される請求項18記載のワクチン。
- 前記内皮細胞が、サイトカイン活性化内皮細胞、及びICAM−1、VAM−1、MAdCAM−1、及びPNAd−を発現する内皮細胞から成る群から選択される請求項6記載のワクチン。
- 前記微生物か、コレラ菌(Vibrio cholerae)、尿路原性大腸菌(Esche richia coli)、腸管出血性大腸菌、腸管病原性大腸菌、サルモネラ(Salmonell a)種、赤痢菌(Shigella)種、シュードモナス(Pseudomonas)種、プロテウス(P roteus)種、肺炎桿菌(Klebsiellapneumoniae)、アエロバクター・アエロゲネス(Aerobacter areogenes)及びヘリコバクター・ピロリ(Helicobacter pylori)から成る群から選択される請求項1記載のワクチン。
- 前記微生物が、中央アフリカ産げっ歯類マラリア病原虫(Plasmodium berghei)、熱帯熱マラリア病原虫(Plasmodium falciparum)、ブルセラー(Brucella)種、髄膜炎菌(Neisseria meningitidis)、ブドウ球菌(Staphyloco ccus)種、ぺスト菌(Pasteurella pestis)、リーシュマニア(Leishmania)、ネズミマクムシ(Trypanosoma)及び野兎病菌(Pasteurella tularensis)から成る群から選択される請求項1記載のワクチン。
- 前記微生物が、ヒト型結核菌(Mycobacterium tuberculosis)、レジュネラ(Legionella)、ブドウ球菌種、連鎖球菌(Streptococcus)種、百日咳菌(Bordetella pertussis)、ペスト菌、インフルエンザ菌(Hemophilus influe nzae)及びジフテリア菌(Corynebacterum diphtheriae)から成る群から選択される請求項1記載のワクチン。
- 前記微生物が、ブラストミセス(Blastomyces)、アスペルギルス(Aspe rgillus)、クリプトコックス(Crystococcus)、カンジダ(Candida)、ヒストプラスマ(Histoplasma)、コクシジオイデス(Coccidioides)及び藻菌類(Phycomyce tes)から成る真菌寄生物群から選択される請求項1記載のワクチン。
- 前記微生物が、赤痢アメーバ(Entamoeba histolytica)、ランブル鞭毛虫(Giardia lamblia)およびクリプトスポリジウム(Cryptosporidium)から成る腸管寄生物群から選択される請求項1記載のワクチン。
- 前記微生物が、淋菌(Neisseria gonnorhoeae)、クラミジア(Chlamydi a)、梅毒トレポネーマ(Treponema pallidium)、腟トリコモナス(Trichomonas va ginales)及び三鞭毛トリコモナス(Tritrichomonas foetus)から成る生殖泌尿器官群から選択される請求項1記載のワクチン。
- 前記微生物か、インフルエンザA、インフルエンザB、インフルエンザC、麻疹(Measles)ウイルス、おたふく風邪(Mumps)ウイルス、アデノウイルス、リノウイルス(Rhinovirus)、ポリオウイルス、肝炎ウイルス、ハンタウイルス、ヘルペスウイルス、風疹ウイルス、ヒト免疫不全ウイルス(HIV)及びコクサッキーウイルスから成るウイルス群から選択される請求項1記載のワクチン。
- 前記宿主細胞が、肺胞マクロファージ、及び鼻咽頭及び肺胞の内皮及び上皮細胞から成る群から選択される呼吸器細胞である請求項1記載のワクチン。
- 前記ワクチンが、ジフテリア菌外毒素、百日咳菌毒素、志賀赤痢菌(1型)毒素、ネズミチフス菌(Salmonella typhimurium)毒素、コレラ菌毒素、腸内出血性大腸菌ベロ毒素、腸内病原性大腸菌腸管毒、緑膿菌外毒素、破傷風菌外毒素及びボツリヌス菌外毒素から成る群から選択される外毒素のβ−オリゴマー上の接着性領域のペプチドドメインを含んでいる請求項9記載のワクチン。
- 前記ワクチンが、大腸菌、淋菌、髄膜炎菌、チフス菌(Salmonella typhi)、ネズミチフス菌、他のサルモネラ種、緑膿菌及びエルジニア・エンテロコリチカ(Yersinia enterocolitica)から成る群から選択される微生物に示される繊毛上の接着性レクチン領域のペプチドドメインから成る請求項4記載のワクチン。
- 前記ワクチンが、大腸菌、エルジニア・エンテロコリチカ、偽結核エルジニア菌(Yersinia pseudotuberculosis)、ヘリコバクター・ピロリ、コレラ菌、チフス菌、ネズミチフス菌、志賀赤痢菌、リーシュマニア、ランブル鞭毛虫、赤痢アメーバ、カンジダアルビカンス及びハフニア・アルベイ(Hafnia alvae)から成る群から選択される微生物の細胞表面の糖タンパク質接着分子のペプチドドメインから成る請求項8記載のワクチン。
- 前記ワクチンが、神経系細胞上のシアル酸リガンドに結合する糖タンパク質接着分子のペプチドドメインから成る請求項4記載のワクチン。
- 前記ワクチンが、髄膜炎菌及び大腸菌K1から成る群から選択される微生物糖タンパク質接着分子のペプチドドメインから成る請求項31記載のワクチン。
- 白血球、内皮細胞及び上皮細胞から成る群から選択される細胞の宿主細胞接着タンパク質又は炭水化物糖接合体を模倣する微生物付着分子に特異的なモノクローナル抗体から成ることを特徴とする診断アッセイ。
- 微生物付着分子の接着性ドメインを模倣し、かつ前記微生物付着分子の接着性ドメインに特異の抗体と反応するペプチド又はオリゴペプチドから成ることを特徴とする診断アッセイ。
- 微生物付着分子に特異なモノクローナル抗体で被覆された超常磁性ビーズから成ることを特徴とする臨床検体中の微生物接着分子を迅速に検出するための診断アッセイ試験用キット。
- 請求項15記載の宿主細胞炭水化物リガンド分子を発現する糖脂質マトリックスから成り、微生物付着分子に特異的に結合する診断アッセイ試験用組成物。
- 選択された病原体又はその毒素の宿主細胞上の分子アドレスへの結合を阻止し、又は前記選択された病原体の更なる定着、その後の病原体が関与する宿主の信号伝達を予防することができる1種又はそれ以上の付着分子又はその断片から成ることを特徴とする治療用組成物。
- 前記ペプチド分子が、宿主接着分子のセレクチンファミリーのリガンドに結合する請求項36記載の治療用オリゴペプチド又は糖ペプチド。
- 前記ペプチド分子が、宿主接着分子のインテグリンファミリーのリガンドに結合する請求項36記載の治療用オリゴペプチド又は糖ペプチド。
- 微生物付着分子に結合する宿主標的細胞上のリガンドを構造的に模倣する分子から成ることを特徴とする治療用オリゴペプチド又は糖ペプチド。
- 微生物付着分子に結合する宿主標的細胞上のリガンドに構造的に関連する分子から成り、感染症を治療又は予防するために使用される請求項15記載の治療用炭水化物。
- 可溶性の形態で、又は感染症の治療に使用される生の又は無毒化細胞担体中の脂質層に固定化した請求項15記載の1種又はそれ以上の分子から成ることを特徴とする感染症を治療するための治療用炭水化物。
- 多価マトリックス中で微生物付着分子に結合する請求項15記載の分子から成ることを特徴とする感染症を治療又は予防するための治療用糖脂質。
- 選択された宿主細胞リガンドの選択された病原体上の分子アドレスへの結合を阻止し、又は前記選択された病原体の更なる定着、その後の病原体が関与する宿主の信号伝達を予防することができる1種又はそれ以上の付着分子又はその選択された断片から成ることを特徴とする治療用組成物。
- 前記送達系が、ファージ、生ベクター、サルモネラ種、赤痢菌種、アデノウイルス、リポソーム、M13ファージ、カウピーモザイクウイルス、アルギン酸ゲル、ペプチド接合体及び糖接合体から成る群から選択される請求項1記載のワクチン。
- タンパク質、炭水化物、脂質分子及びそれらの接合体又は混合物から成る群から選択される付着分子から成る宿主細胞接着分子を模倣する微生物付着分子から成ることを特徴とするワクチン。
- 病原体の接着分子を模倣し、かつ宿主の白血球、内皮細胞、上皮細胞及び標的細胞から成る群から選択される細胞のレセプター分子と損後作用する分子から成ることを特徴とする治療用オリゴペプチド又は糖ペプチド。
- 病原体に対し免疫を発現するためのワクチンを得る方法であって、
(a) 宿主細胞に発現した領域を模倣し、かつ病原体の接着分子と相互作用する(を阻止する)病原体の付着分子(PAM)又はその断片を単離し;
(b) 前記単離した付着分子の少なくとも1つの領域に対する1つ又はそれ以上のモノクローナル抗体(mAbs)を発現し;
(c) 前記mAbsによって結合されたエピトープを単離して、病原体の付着分子のトポロジーを実質的に反映する分子ドメインから成るワクチンを得るの各工程から成ることを特徴とする方法。 - 前記単離工程が、接着分子のリガンド又は精製リガンドを発現する標的細胞を用いる剪断アッセイによって行われる請求項50記載の方法。
- 病原体/宿主標的細胞相互作用に対するmAbsの特異性及び阻止特性を剪断アッセイによって分析する工程をさらに含む請求項50記載の方法。
- 前記エピトープを単離する工程が、ファージ−表示ライブラリーを含む請求項50記載の方法。
- 病原体に対し免疫を発現するためのワクチンを得る方法であって、
(a) 病原体の接着分子を模倣し、かつ動物宿主の白血球、内皮細胞、上皮細胞及び他の標的細胞から成る群から選択される細胞のレセプター分子と相互作用する分子を単離し;及び
(b) 前記分子をワクチンに配合するの各工程から成ることを特徴とする方法。
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US747795P | 1995-11-22 | 1995-11-22 | |
| US60/007,477 | 1995-11-22 | ||
| PCT/US1996/018796 WO1997018790A2 (en) | 1995-11-22 | 1996-11-21 | Therapeutic and diagnostic agents for the treatment of microbial infections |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2000503630A JP2000503630A (ja) | 2000-03-28 |
| JP2000503630A6 true JP2000503630A6 (ja) | 2004-07-08 |
Family
ID=21726413
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP09519932A Ceased JP2000503630A (ja) | 1995-11-22 | 1996-11-21 | 微生物感染症の治療用治療剤及び診断剤 |
Country Status (7)
| Country | Link |
|---|---|
| EP (1) | EP0869801B1 (ja) |
| JP (1) | JP2000503630A (ja) |
| AT (1) | ATE258057T1 (ja) |
| AU (1) | AU1122697A (ja) |
| CA (1) | CA2238262A1 (ja) |
| DE (1) | DE69631381T2 (ja) |
| WO (1) | WO1997018790A2 (ja) |
Families Citing this family (18)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US6204431B1 (en) | 1994-03-09 | 2001-03-20 | Abbott Laboratories | Transgenic non-human mammals expressing heterologous glycosyltransferase DNA sequences produce oligosaccharides and glycoproteins in their milk |
| WO1998037915A1 (en) * | 1997-02-26 | 1998-09-03 | Hsc Research And Development Limited Partnership | Antibiotic-ligand conjugates and methods of use thereof |
| GB9721189D0 (en) * | 1997-10-08 | 1997-12-03 | Speywood Lab The Limited | Analgesic conjugates |
| GB9907429D0 (en) | 1999-03-31 | 1999-05-26 | Microbiological Res Authority | Modulation of C-fibre activity |
| CN1173706C (zh) | 2001-02-28 | 2004-11-03 | 中国人民解放军第三军医大学 | N-乙酰-d-氨基葡萄糖在制备治疗宫颈糜烂药物中的应用 |
| CN1210038C (zh) | 2003-03-27 | 2005-07-13 | 中国人民解放军第三军医大学 | N-乙酰氨基葡萄糖在制备用于治疗毒物和药物中毒致脏器损伤的药物中的应用 |
| CN1232257C (zh) | 2003-03-27 | 2005-12-21 | 中国人民解放军第三军医大学 | N-乙酰氨基葡萄糖在制备治疗和控制物理化学因素致非特异性炎症的药物中的应用 |
| US7332179B2 (en) | 2003-12-12 | 2008-02-19 | Kimberly-Clark Worldwide, Inc. | Tissue products comprising a cleansing composition |
| FR2876798A1 (fr) * | 2004-10-14 | 2006-04-21 | Univ Clermont Auvergne | Diagnostic et traitement de la maladie de crohn |
| US7642395B2 (en) | 2004-12-28 | 2010-01-05 | Kimberly-Clark Worldwide, Inc. | Composition and wipe for reducing viscosity of viscoelastic bodily fluids |
| FR2927171B1 (fr) * | 2008-02-01 | 2010-03-19 | Apoh Technollgies Sa | Procede de detection et/ou de quantification et/ou d'identification in vitro de bacteries dans un materiau biologique |
| UA110325C2 (en) * | 2009-07-03 | 2015-12-25 | Australian Biomedical Company Pty Ltd | Medicinal carbohydrates for treating respiratory conditions |
| WO2014147484A2 (en) | 2013-03-21 | 2014-09-25 | Caprion Proteomics Inc. | Brucellosis, q-fever, and lyme disease biomarkers and uses thereof |
| US12194157B2 (en) | 2020-04-09 | 2025-01-14 | Finncure Oy | Carrier for targeted delivery to a host |
| AU2021252164A1 (en) | 2020-04-09 | 2022-12-15 | Finncure Oy | Mimetic nanoparticles for preventing the spreading and lowering the infection rate of novel coronaviruses |
| CN112858675B (zh) * | 2021-01-05 | 2022-03-29 | 杭州奥泰生物技术股份有限公司 | 一种新型冠状病毒抗原、抗体联合智能化检测装置 |
| AU2022249139A1 (en) | 2021-04-01 | 2023-10-05 | Becton, Dickinson And Company | Methods for enhancing specificity and sensitivity of group a streptococcus immunoassay |
| CN113884682B (zh) * | 2021-04-30 | 2023-07-21 | 中国医学科学院血液病医院(中国医学科学院血液学研究所) | 检测巨核细胞或血小板表面标志分子的产品在制备检测感染的产品中的用途 |
Family Cites Families (5)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4470967A (en) * | 1982-10-05 | 1984-09-11 | Iowa State University Research Foundation | Lectin-containing anti-viral vaccines for domestic animals and method of preparation |
| US5081034A (en) * | 1988-11-14 | 1992-01-14 | Brigham & Women's Hospital | Cloned genes which encode elam-1 |
| EP0391088B1 (en) * | 1989-03-16 | 1997-01-02 | Center For Blood Research, Inc. | Use of functional derivatives of the intercellular adhesion molecule ICAM-1 in anti-viral therapy |
| CA2095642C (en) * | 1990-08-02 | 1999-12-14 | Howard C. Krivan | Adhesion receptors for pathogenic or opportunistic microorganisms |
| WO1994005269A1 (en) * | 1992-09-08 | 1994-03-17 | Centocor, Inc. | Peptide inhibitors of selectin binding |
-
1996
- 1996-11-21 JP JP09519932A patent/JP2000503630A/ja not_active Ceased
- 1996-11-21 DE DE69631381T patent/DE69631381T2/de not_active Expired - Fee Related
- 1996-11-21 AT AT96942049T patent/ATE258057T1/de not_active IP Right Cessation
- 1996-11-21 AU AU11226/97A patent/AU1122697A/en not_active Abandoned
- 1996-11-21 EP EP96942049A patent/EP0869801B1/en not_active Revoked
- 1996-11-21 CA CA002238262A patent/CA2238262A1/en not_active Abandoned
- 1996-11-21 WO PCT/US1996/018796 patent/WO1997018790A2/en not_active Ceased
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| EP0869801B1 (en) | Therapeutic and diagnostic agents for the treatment of microbial infections | |
| Girón et al. | Characterization of fimbriae produced by enteropathogenic Escherichia coli | |
| Karlsson | Microbial recognition of target-cell glycoconjugates | |
| Warren et al. | Assessment of ability of murine and human anti-lipid A monoclonal antibodies to bind and neutralize lipopolysaccharide. | |
| Garcia-del Portillo et al. | Salmonella induces the formation of filamentous structures containing lysosomal membrane glycoproteins in epithelial cells. | |
| Menozzi et al. | Identification of a heparin-binding hemagglutinin present in mycobacteria. | |
| Apter et al. | Monoclonal immunoglobulin A antibodies directed against cholera toxin prevent the toxin-induced chloride secretory response and block toxin binding to intestinal epithelial cells in vitro | |
| KR100422055B1 (ko) | 항원성이보강된헬리코박터sp를생산하는방법과이를포함하는방법 | |
| Hoepelman et al. | Consequences of microbial attachment: directing host cell functions with adhesins | |
| DE3688246T2 (de) | Kunstpolypeptide zum nachweis mykobakterieller infektionen. | |
| JP4150082B2 (ja) | 独特の髄膜炎菌性bエピトープを規定するモノクローナル抗体およびワクチン組成物の調製におけるそれらの使用 | |
| EP1630168B1 (en) | Molecular mimetics of meningococcal B peptides | |
| KR101573648B1 (ko) | 합성 베타-1,6 글루코사민 올리고당에 관한 방법 및 조성물 | |
| JPH04501107A (ja) | 在郷軍人病ワクチン及びその製造方法 | |
| CA2252438C (en) | Histidine-tagged intimin and methods of using intimin to stimulate an immune response and as an antigen carrier with targeting capability | |
| Rosok et al. | Generation and characterization of murine antiflagellum monoclonal antibodies that are protective against lethal challenge with Pseudomonas aeruginosa | |
| US20040247611A1 (en) | Identification of pathogen-ligand interactions | |
| US5955293A (en) | Assays for shiga toxin and shiga-like toxins | |
| CN101107009A (zh) | 包含纤连蛋白结合蛋白或纤连蛋白结合肽的疫苗组合物 | |
| JP2001503606A (ja) | Helicobacter pyloriアドヘシン結合型抗原 | |
| US8926986B2 (en) | Use of saccharides cross-reactive with Bacillus anthracis spore glycoprotein as a vaccine against anthrax | |
| Vanrompay et al. | Ultrastructural changes in avian Chlamydia psittaci serovar A-, B-, and D-infected Buffalo Green Monkey cells | |
| JPH06501383A (ja) | 病原体又は日和見感染微生物に対する接着受容体 | |
| MXPA98004109A (en) | Therapeutic and diagnostic agents for the treatment of microbial infections | |
| AU1370101A (en) | Therapeutic and diagnostic agents for the treatment of microbial infections |