JP2006296426A - 1型ウシヘルペスウイルスの欠失突然変異体、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット - Google Patents
1型ウシヘルペスウイルスの欠失突然変異体、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット Download PDFInfo
- Publication number
- JP2006296426A JP2006296426A JP2006109215A JP2006109215A JP2006296426A JP 2006296426 A JP2006296426 A JP 2006296426A JP 2006109215 A JP2006109215 A JP 2006109215A JP 2006109215 A JP2006109215 A JP 2006109215A JP 2006296426 A JP2006296426 A JP 2006296426A
- Authority
- JP
- Japan
- Prior art keywords
- glycoprotein
- gene
- type
- bovine herpesvirus
- deletion
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Granted
Links
Images












Classifications
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/005—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from viruses
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/12—Viral antigens
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/12—Viral antigens
- A61K39/245—Herpetoviridae, e.g. herpes simplex virus
- A61K39/265—Infectious rhinotracheitis virus
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P31/00—Antiinfectives, i.e. antibiotics, antiseptics, chemotherapeutics
- A61P31/12—Antivirals
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P31/00—Antiinfectives, i.e. antibiotics, antiseptics, chemotherapeutics
- A61P31/12—Antivirals
- A61P31/20—Antivirals for DNA viruses
- A61P31/22—Antivirals for DNA viruses for herpes viruses
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
- C07K16/08—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from viruses
- C07K16/081—DNA viruses
- C07K16/085—Orthoherpesviridae (F), e.g. pseudorabies virus or Epstein-Barr virus
- C07K16/087—Herpes simplex virus
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/85—Vectors or expression systems specially adapted for eukaryotic hosts for animal cells
- C12N15/86—Viral vectors
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/51—Medicinal preparations containing antigens or antibodies comprising whole cells, viruses or DNA/RNA
- A61K2039/525—Virus
- A61K2039/5254—Virus avirulent or attenuated
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/55—Medicinal preparations containing antigens or antibodies characterised by the host/recipient, e.g. newborn with maternal antibodies
- A61K2039/552—Veterinary vaccine
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K2319/00—Fusion polypeptide
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2710/00—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA dsDNA viruses
- C12N2710/00011—Details
- C12N2710/16011—Herpesviridae
- C12N2710/16711—Varicellovirus, e.g. human herpesvirus 3, Varicella Zoster, pseudorabies
- C12N2710/16722—New viral proteins or individual genes, new structural or functional aspects of known viral proteins or genes
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2710/00—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA dsDNA viruses
- C12N2710/00011—Details
- C12N2710/16011—Herpesviridae
- C12N2710/16711—Varicellovirus, e.g. human herpesvirus 3, Varicella Zoster, pseudorabies
- C12N2710/16732—Use of virus as therapeutic agent, other than vaccine, e.g. as cytolytic agent
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2710/00—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA dsDNA viruses
- C12N2710/00011—Details
- C12N2710/16011—Herpesviridae
- C12N2710/16711—Varicellovirus, e.g. human herpesvirus 3, Varicella Zoster, pseudorabies
- C12N2710/16734—Use of virus or viral component as vaccine, e.g. live-attenuated or inactivated virus, VLP, viral protein
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2710/00—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA dsDNA viruses
- C12N2710/00011—Details
- C12N2710/16011—Herpesviridae
- C12N2710/16711—Varicellovirus, e.g. human herpesvirus 3, Varicella Zoster, pseudorabies
- C12N2710/16741—Use of virus, viral particle or viral elements as a vector
- C12N2710/16743—Use of virus, viral particle or viral elements as a vector viral genome or elements thereof as genetic vector
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Virology (AREA)
- Organic Chemistry (AREA)
- General Health & Medical Sciences (AREA)
- Genetics & Genomics (AREA)
- Medicinal Chemistry (AREA)
- Engineering & Computer Science (AREA)
- Molecular Biology (AREA)
- Public Health (AREA)
- Animal Behavior & Ethology (AREA)
- Biophysics (AREA)
- Biochemistry (AREA)
- Microbiology (AREA)
- Veterinary Medicine (AREA)
- Pharmacology & Pharmacy (AREA)
- Immunology (AREA)
- Biotechnology (AREA)
- Zoology (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Mycology (AREA)
- Epidemiology (AREA)
- Wood Science & Technology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- General Engineering & Computer Science (AREA)
- Biomedical Technology (AREA)
- Communicable Diseases (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Oncology (AREA)
- Gastroenterology & Hepatology (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Plant Pathology (AREA)
- General Chemical & Material Sciences (AREA)
- Physics & Mathematics (AREA)
- Tropical Medicine & Parasitology (AREA)
- Medicines Containing Antibodies Or Antigens For Use As Internal Diagnostic Agents (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)
- Peptides Or Proteins (AREA)
Abstract
【解決手段】糖蛋白質gE−遺伝子中に欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。突然変異株は、さらにチミジンキナーゼ遺伝子および/または糖蛋白質gI遺伝子の欠失を有し、非対称遺伝子の挿入を有する。gE−遺伝子またはその一部から成る再結合核酸。糖蛋白質gE、その上に基礎をおくペプチド、糖蛋白質gEとgIとの複合物、それらに対する抗体。これらの物質のいずれか1つから成るワクチンと診断キット。
【選択図】なし
Description
本発明は、病原体によって引き起こされる疾病に関係したワクチン注射および診断法の分野に関するもので、弱毒性ワクチンまたは不活化ワクチンを生成する古典的な方法とDNA組換技術に基づく近代的方法両方の使用に関係している。
より詳細には、本発明は、動物、特に牛を1型ウシヘルペスウイルス(BHV-1)から守るための弱毒性生ワクチンおよび不活化ワクチンに関するもので、これらのワクチンは、安全でかつ効能があるばかりでなく、ワクチン接種をうけた群における、非感染動物と感染動物とを識別することも可能にする。
ワクチン接種群における非感染動物と感染動物の識別のための試験に使用が可能である診断キットも本発明の一部である。
牛の伝染性鼻腔気管炎ウイルス(IBRV)および伝染性濃外陰部腔炎ウイルス(IPVV)を含むBHV-1は、牛の呼吸器疾患、生殖能力、障害の解明に重要な役割を果たす。BHV-1は、急性感染後、潜伏した形で宿主内にそのまま残っていることが多い。潜伏ウイルスはとりわけ、ストレス(これは臨床現象を伴うことも、伴わないこともある)の影響下で再び活性化し、続いて排泄されることがあり得る。結果として、感染した牛は終生BHV-1を蔓延するものとみなす必要がある。BHV-1はオランダの養牛場の推定75%において風土病として発生している。特に、高齢牛の血清反応が陽性である。
本発明は、糖蛋白質gE-遺伝子に欠失を有するBHV-1の欠失変異株を提供する。"〜に欠失を"という語は、全体としての遺伝子の欠失を含むことを意図している。本発明の好適な実施例は、以下に述べる欠失変異株Difivac-1のような、弱毒処置によって引き起こされた糖蛋白質gE-遺伝子における欠失を有するBHV-1の欠失変異株によって構成される。
本発明は、生ワクチンおよび不活化ワクチン両方から成る一組のBHV-1ワクチンに関するもので、これらはどちらも糖蛋白質gE-遺伝子の全部または一部を欠いている。この組は、自然gE欠失変異株も、チミジンキナーゼ遺伝子および/または糖蛋白質gI-遺伝子の欠失を含むことも含まないこともある構成gE欠失変異株も、および異種遺伝子ベクタとして使用される構成gE欠失変異株も含む。さらに本発明は、BHV-1糖蛋白質gE-遺伝子をコード化するヌクレオチド配列、これらの配列から誘導されるオリゴヌタレオチド、該糖蛋白質gEそれ自身、そこから誘導されるペプチド、および該gE糖蛋白質とそこから誘導されるペプチドに対して向けられる(モノクローナルまたはポリクローナル)抗体に関する。また本発明は、BHV-1の糖蛋白質gEとgIの複合物、およびかかる複合物に対して向けられる抗体に関する。
本発明に従ったこれらの物質は、以下のために使用することができる。
これはBHV-1に感染した動物と、ワクチン接種した動物の間の区別が可能な従来のワクチンおよび構成ワクチンを一緒に使用することが可能。
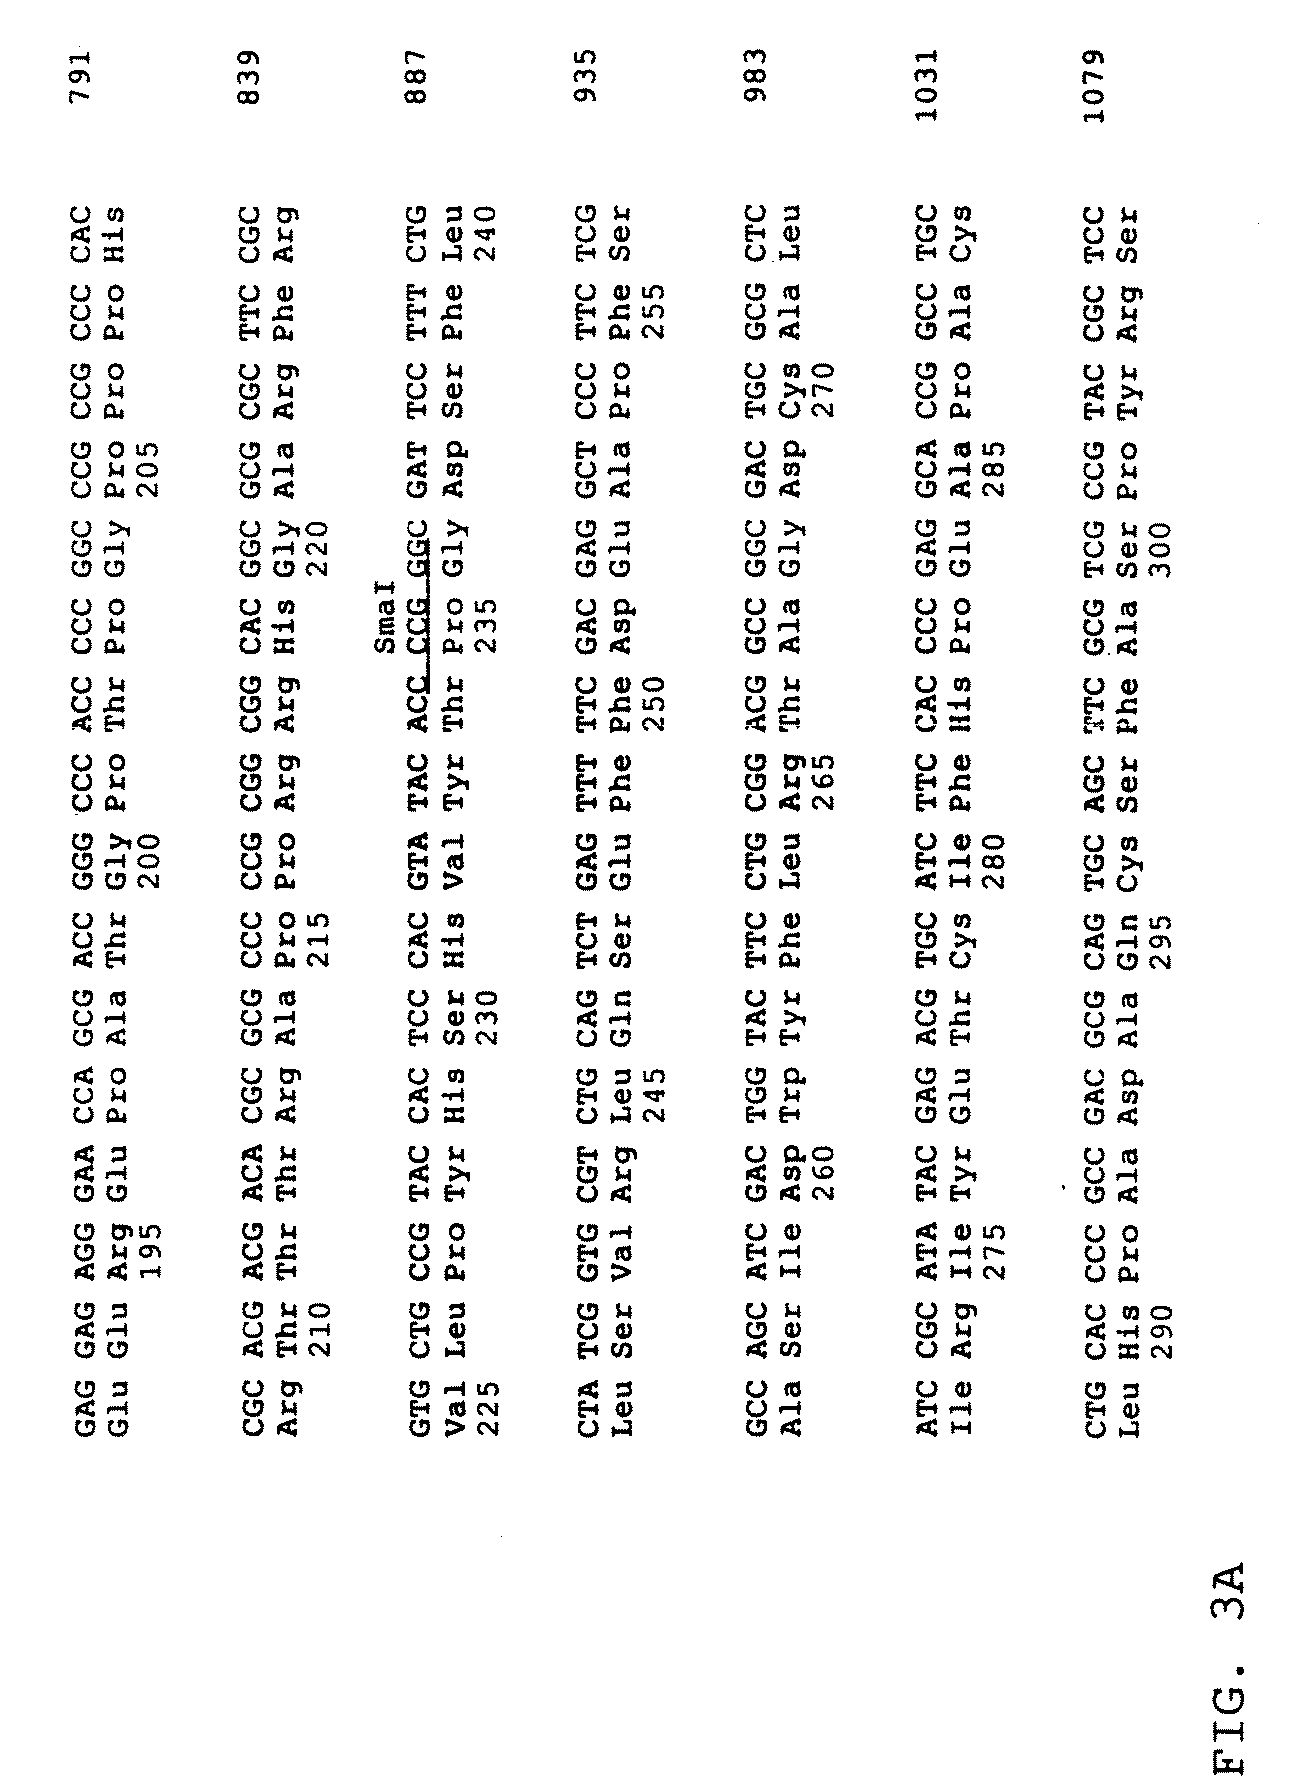
糖蛋白質gE-遺伝子(図3A)およびこの遺伝子についてコード化する単離DNAフラグメントについての、例に記載のDNA配列分析の結果により、標準的な分子生物学的処置を用いて、gE蛋白質のペプチド(オリゴまたはポリペプチド)を合成すること、および原核的方法(バクテリア中)または真核的方法(たとえば、ネズミの細胞において)により、gE蛋白質の全体を、またはその一部を表すことが共に可能となる。これらの方法によって、たとえばgE特有のモノクローナル抗体の生成に役立つことができるgE特有の抗原を得ることができる。さらに、gE特有の抗原(および、gE特有のモノクローナル抗体)を血清試験において使用することができ、BHV-1 gE欠失ワクチンの接種をした動物と野性型BHV-1ウイルスに感染した動物の間の区別が可能となる。
既知の蛋白質コード化配列に基づき、自動合成装置により、約40〜50のアミノ酸のポリペプチドを作ることができる。BHV-1菌株LamのgE糖蛋白質の蛋白質コード化配列が解明されたので(図3A)、このBHV-1 gE糖蛋臼質のポリペプチドの合成が可能となる。かかるポリペプチドを用いて、標準的な方法に従って、マウスやウサギなどの実験動物を免疫化し、gE特有抗体を作ることができる。さらに、これらのgE特有ペプチドを用いて、抗gE抗体がgE蛋白質(エピトープ)と反応する位置を、たとえばPEPSCAN法(Geysen et a1.,1984,Proc.Natl.Acad,Sci.USA 81,3998〜4002)により、さらに特定することができる。gE特有のオリゴペプチドも抗gE抗体を実証する血清試験において使用することができる。
細菌中にてgE蛋白質を合成するため(すなわち、gEの原核発現)、糖蛋白質gEについて、またはその一部についてコード化するDNAフラグメントを、原核発現ベクタ中にタローン化しなければならない。原核発現ベクタは、環状DNA分子で、これは別個に複製してゆく分子(プラスミド)として、細菌中で自らを維持することができる。これらの発現ベクタは、抗性物質抵抗についてコード化を行い、したがって発現ベクタを伴う細菌の選択を可能にする。1つ、またはそれ以上の標識遺伝子を含む。さらに、発現ベタタは、(制御可能であることも多い)プロモータ領域を有しており、該領域の背後にDNAフラグメントを結合することができ、これらのフラグメントは、プロモータの影響により発現される。現行の多くの原核発現ベクタにおいては、いわゆる担体蛋白質に融合し、所望の蛋白質が発現している。そのために、ベクタ中ではプロモータの後に、担体蛋白質についてのコード化配列が位置しており、所望のDNAフラグメントがこれに直接隣接して結合されている。融合蛋白質は、多くの場合より安定で、認識および/または単離もより簡単である。一定の細菌株にて、特定の融合蛋白が達成することができる定常状態レベルは融合によって、および菌株によって異なっている。種々の組合わせを試みることが慣例になっている。
蛋白質の原核発現は幾つかの利点をもたらしてくれるが、蛋白質は真核細胞で起こるグリコシル化のような修飾変更を欠いている。その結果、真核発現蛋白質は多くの場合より適切な抗原である。マウスの細胞のような真核細胞における蛋白質の異種発現の場合、真核発現ベクタが使用される。これらのベクタは、プラスミドで大腸菌細胞内で増殖させることが可能であるばかりでなく、真核細胞中にて安定した状態で生存することもできる。これらのベクタは、原核選択マーカの他に、真核選択マーカも含む。原核発現ベクタに似て、真核発現ベクタは、所望の遺伝子が後に結合することができるプロモータ領域を含んでいる。しかしながら、真核ベクタにおけるプロモータ配列は、真核細胞に特有である。また、真核ベクタにおいては、担体蛋白質に対する融合が利用されることは滅多にない。これらのベクタは、標準的なトランス・フェタション法(F.L.Graham and A. J. van der Eb. 1973, Virology 52,456〜467)により真核細胞中に導かれる。真核プラスミドベクタの他に、ウィルスベクタもあり、この場合には、異種遺伝子がウィルス(たとえば、レトロウィルス、ヘルペスウィルス、ワクシニアウィルス)のゲノム中に導かれる。次いで、真核細胞に組換えウィルスを感染させることができる。
一般に、個々の遺伝子産物にとって、ベクタや細胞はどういったタイプのものが最適であるかということを予測することはできない。大抵の場合、幾つかの組合せが試みられている。
gEに対する抗体に基づき、Difivac-1のワクチン接種をされた牛と、野性型BHV-1に感染した牛を区別するための血清学的方法は、好適にはgEに対して向けられたモノクローナル抗体の使用に基づく。これらの抗体は、以下の方法で用いることができる。
この場合は、マイクロタイタープレートは、gE蛋白質に対して向けられたモノクローナルまたはポリクローナル血清で被覆する。gE抗原調製物との保温の結果、被覆にgEが結合する。試験される牛の血清中のgEに対して特別に向けられた抗体は続いてgEに結合する。これらの結合抗体は、抗-ウシ免疫グロブリン複合物によって認識される。この複合物中の抗体は、ペルオキシダーゼ酵素に共有結合する。最後に、この結合複合物は、色素原基質の添加により、可視のものにされる。この反応の特性は、gE-抗原調製物の代わりに、gE-陰性対照調製物により同じ処置を実施して調べる。各マイクロタイタープレート上には、陽性および陰性の対照血清が含まれる。この試験は、陽性の血清が一定の希釈度において陽性を示す場合に有効である。光学濃度が標準陰性対照血清よりも0.2高い場合には、血清は陽性である。
たとえば、オリゴヌクレオチド(プローブおよびプライマ)をポリメラーゼ連鎖反応に用いて、ワクチン接触を受けた動物と感染した動物を区別することができる。ポリメラーゼ連鎖(PCR)は、病原体の核酸を短時間に数十億倍に増殖させることができる技術である(Depolymerase kettingreactie. P.F,Hilderink, J.A.Wagenaar,J.W.B.van der Giessen and B.A.M. van der Zeijst,1990,Tijdschrift voor Diergeneeskunde deel 115,1111〜1117)。gEオリゴヌタレオチドは、gE陽性ゲノムにおいて、gE陰性ゲノムにおけるものとは異なる生成物が形成されるように選択することができる。これは、gE欠失ワクチンをワクチン接種された動物は、RCR試験において陽性信号を出すという利点がある。しかしながら、この方法は、試験される動物から採取した試料中、たとえば血液中のウイルスの核酸の存在に依存している。
BHV-1急性感染後は、血液中にBHV-1特有の核酸を実証することができる見込みは充分にあるが、しかしながら、BHV-1核酸も、潜伏時に血清中に実証することができるかどうかはまだ確められていない。
BHV-1ゲノム中の異種遣伝子の発現には、その異種遺伝子が挿入されるべき領域についての正確な情報を自由にできることが必要である。必須配列についての妨害はいかなるものもあってはならず、また異種遺伝子の発現に調節配列が利用できなければならない。gE-遺伝子は、必須ではなく、したがって、異種遺伝子gE遺伝子を交換しても問題はない。結果として、この異種遺伝子を、gE遺伝子が調節配列の影響下にあるように配置することができる。しかしながら、gE遺伝子の調節配列を使用する必要はない。異種遺伝子の発現は、代わりに、他のもの、たとえば種々の遺伝子のより強い調節配列により制御することができる。また、gE遺伝子の(輸出)信号ペプチドに異種遺伝子を連結することも可能であり、したがって異種遺伝子生成物の分泌に影響させることができる。gE遺伝子およびgE蛋白質についての詳細な知識によって、非常に適切に調整された方法で、ベクタとしてBHV-1を用いる可能性が与えられることは明らかである。発生するベクタは、さらに野性型と血清学的に区別することができる。異種遺伝子を発現するBHV-1変異株の構成は、例に示したgE欠失変異株の構成と同じ方法で実施することができる。しかしながら、次に、欠失フラグメントは、異種遺伝子が欠失位置に配置されているフラグメントと交換すべきである。
1)自然gE欠失変異株の単離および同定
a)自然変異株の単離
ゲノムDNAを、従来法により弱毒化された多くのワクチンから標準的方法に従って単離し、制限酵素を用いて分析した。特に、野性型BHV-1ウイルスとの区別を可能とするに適切と思われるゲノム偏差について研究した。
特に、BHV-1ゲノムのUs領域に注意した。これは、その領域に-ヘルペス単ウイルス1との類似により-非必須糖蛋白質に対する多くの遺伝子コーディングが配置されているからである〔Identification of a herpes simplex virus1 glycoprotein gene within a gene cluster dispensable for growth in cell culture, R. Longnecker,S.Chatterjec,R.J. Whitley and B.Roizwan(1987)Proc、Natl. Acad. Sci,84,4303〜4307〕。
ユーゴスラビア、サグレフ大学より入手したBHV-1ワクチンバッチ(Lugovic et a1.,Veterinarski Arhiv 55,241〜245,1985)は、ウシの胚腎臓細胞およびウシの胚気管細胞(Ebtr)上で多くの継代を行った後に、正常なUs領域の他に、偏差のあるUs領域を有していることを証明した。さらにこのワクチンは、Ebtr細胞に大きなプラークと小さなプラークの両方を形成するように思われた。この混合群より、それぞれの国ごとに選択された小さなプラークで偏差のあるUs領域を有するウイルスを、3つの限界希釈ステップによって単離した。この経路を介して単離されたウイルスをさらに試験し、Difivac-1を希釈した。これは、1992年5月27日Institut Pasteur,Paris,Franceに寄託番号1-1213として寄託された。
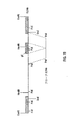
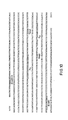
US領域におけるこの偏差をさらに分析するために、Difivac-1のゲノムDNAを標準的な方法で単離し、サザンブロット分析を行った(図1A)。32Pのラベルを貼った野性型HindIIIKフラグメントを有するこのブロットのハイブリッド形成により、Us領域の中心に位置しているこのフラグメントは、Difivac-1においては、1,0キロベース(kb)程度短い。さらに、この分析によって、欠けている部分の位置をおおよそ推定することができた(図1B)。この欠失をさらに分析するために、野性型BHV-1菌株LamのUs領域を単離し、原核ベクトル中にクローン化した。そのために、標準的な方法に従って、Lam菌株(図2A)のゲノムDNAを単離し、ベクタ、pUC18、pACYCおよびpBR322中にクローン化した(図2B)。欠失の推定位置周辺の領域の物理的地図を作成した(Fig.2c)。この物理的地図からスタートして、この領域のヌクレオチド配列の決定に適したサブクローンをベクタpKUN19とpUC18で構成した(図2D)。これらのサブクローンを用いて、全領域の2つの鎖のヌクレオチド配列(図2Cに指示)をサンガー法を用いて決定した。このヌクレオチド配列(SEQ.ID.NO.1)をPc、/Geneプログラムを用いて分析した。概念翻訳から、ヌクレオチド(nt)168〜nt1893が575のアミノ酸のオープンリーディングフレームのための遺伝暗号を指定する(図3A)ものと推定された。さらに分析の結果、このアミノ酸配列は図3Bに示されているように、貫膜糖蛋白質の特性を有していることが示された。実は、最初の26のアミノ酸(aa)は、典型的真核性の輸出信号として認識され、aa423とaa450の間の領域は、貫膜領域として認識される。さらに、3つのポテンシャルN-結合、糖鎖形式部位がこの配列において発生する。この推定アミノ酸配列は、ヘルペス単ウイルス(HSV)の糖『蛋白質gE-遺伝子に明らかに類似したところを示している。(図4Aおよび図4B参照)。これらおよびその他の類似点により、見つけられた遺伝子は、BHV-1のgE同族体であるという結論を正当化するものである。この理由から、遺伝子はgEと呼ばれる。このBHV-1 gE-遺伝子がDifivac-1においてどの程度欠失しているのかを判断するために、p318フラグメントを単離した。p318フラグメントは、要求されるBHV-gEがリーディングルームを開く前に、Alul部位55ntで開始し、リーディングルームの後の133ntを終了する。ゲノムDifivac-1DNAを、サザンブロットハイブリッド形成を用いて、このp318フラグメントで分析した。この結果、Difivac-1は検出可能なp318配列を全く含んでいないことが明らかとなった(図5)。この試験によりDifivac-1は欠失を有し、この欠失はgE遺伝子全体に広がっていることが明らかに実証されていることが確認された。
7週齢のBHV-1血清反応陰性の特有の病原体をもっていない牛でDifivac-1を試験した。8体の牛に2ml,105TCID50の鼻腔内ワクチン接種を行った。2ml中の1mlは各々の鼻孔にスプレーした。各々別々の独立した区画に収容されていた、BHV-1血清反応陰性の特有病原体を持っていない7週齢の8体の牛に2mlの培養基を鼻腔内投与し、非ワクチン接種対照として用いた。ワクチン接種から5週後に、ワクチン接種牛と非ワクチン接種牛に107TCID50、の強毒性BHV-1菌株、Iowaを鼻腔内接種した。接種から6週後に推定される潜伏ウイルスを再活化させるため、全牛に5日間デキサメタゾンにより筋肉内処理を行った。臨床微候、直腸温、発育を監視した。布で拭き取った鼻水からウイルスの単離を行い、血清中の中和抗体力価を求めた。
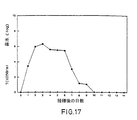
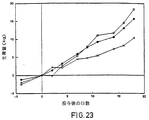
菌株接種後、14日までに、非ワクチン接種牛は全て、無感情、食欲の喪失、目ヤニおよび鼻水の分泌、下あごの歯肉の赤らみ、鼻の粘膜の強い傷害が見られ、また接種後4日で発育が停止した。ワクチンを接種した牛の鼻の粘膜の傷害は小さく、速やかに治癒するもので、発育が止まることはなかった。菌株接種後の1日毎の臨床評価、直腸温、発育の推移を図18,図19および図20に示した。菌種接種後、全牛とも鼻からウイルスを排泄したが、ウイルス排泄の量と期間は、ワクチン接種牛は著しく低かった(図21)。ワクチン接種牛においては、二次抗体反応が見られ、非ワクチン接種牛は全て、菌種接種後抗体を生成した。再活化後、接種ウイルスを1体のワクチン接種牛および5体の非ワクチン接種牛から単離した。Difivac-1を再活化することはできなかった。
結論として、Difivac-1は、BHV-1感染予防のために牛に使用される、安全かつ効能のあるワクチンである。
Difivac-1よりも分子的により明確で、かつ所望されるならば、gE-遺伝子の欠失に加えて、たとえばチミジンキナーゼ遺伝子に欠失を有した識別可能なBHV-1ワクチンと自由に利用できるようにするために、Difivac-1の他に、組換えgE欠失変異株を構成した。糖蛋白質gE-遺伝子の決められた位置からスタートし、gE遺伝子を側面に配置するクローン化されたDNAフラグメントを用いて、gE欠失フラグメントを構成することができた。標準的な技術(F.L.Graham and A.J.van der Eb 1973,Virology52,456〜467)を用いて、,この欠失フラグメントを野性型BHV-1菌株のゲノム中で組換えることができ、その結果gE欠失変異株となった。
構成gE欠失フラグメントと野性型BHV-1のゲノムの間の組換えを効果的なものとするために、2つのDNA分子のマイクログラム量を、F.L.Graham and A.J.van der Eb(1973、Virology52,456〜467)の標準的な方法に従って、ウシの胚気管(Ebtr)細胞に同時トランスフェクションする。細胞の組換えメカニズムは、細胞によって組み込まれた少しの割合のDNA分子(2〜4%)の組換えを導く。組換えられたgE欠失変異株の選択のために、トランスフェクション後に形成されるウィルス混合物を、新鮮なEbtr細胞培養物上に播種する。大抵の場合、これによって発達する、別々のウィルス群(プラク)が、1つのウィルスから生じる。BHV-1菌株LamのgE欠失変異株の単離のために、これらのプラクの内の230を単離し、DifivaC-1に感染した細胞と反応しない、BHV-1特有のモノクロナール抗体による標準的免疫法により試験を行った。これらのモノクロナール抗体を、糖蛋白質gEに対して向ける。230のプラークの内5つがこれらのモノクロナール抗体と反応しなかった。これらの5つのプラークのDNAについてさらに研究を行った。
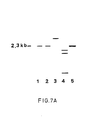
株のDNA分析上述の5つの候補gE欠失変異株の内3つ(1B7,1B8および2H10)のDNA調製物について、標準的なサザンブロット分析技術(Sambrook et al.1989)を用いて試験した。ゲル電気泳動と、プローブとして2.3kb PstI-DraI欠失フラグメントによるサザンブロットハイブリット化がその後に続く、PstIとDraIによるこれらのDNAの2重の消化は、ウィルス群1B7と1B8のゲノムのgE遺伝子は、所望の方法で正確に取り除かれたことを示している。図7Aおよび図7B参照。群2H10は、偏差PstI-DraIフラグメントを有している。gE特有プローブによるサザンブロットハイブリット化により、3つのDNA調製物のいずれにもgE配列は置かれていないことを示している(結果については示されていない)。BHV-1ウィルス群1B7および1B8は、故意の組換gE欠失変異株である。BHV-1ウィルス群1B7はワクチン特性について試験を行った。
わずか1つの遺伝子に欠失を有するBHV-1組換欠失変異株は、十分に毒性が低下したものではないかもしれないので、BHV-1菌株LamおよびHarberinkのチミジンキナーゼ(CTK)遺伝子にも欠失を与えた。これらの変異株は、上記のgE欠失変異種に対して使用される方法と類似の方法で構成された(結果は示されていない)。これらのTK欠失変異株はTK/gE二重欠失変異株の構成に使用した。
株の構成gE単欠失変異株のワクチン接種をうけた牛は、抗gI/gE抗体の検出を妨害するおそれのある抗-gI抗体を生成する可能性があるため(以下に考察)、gI/gE2重欠失を有するワクチンについても発明した。このようなgI/gE二重欠失変異株は、gE単欠失変異種の構成に使用されるのと同じ処置を用いて構成することができる。gE遺伝子の5'端部を包括する、1.8kb PstIフラグメントの上流側端部のヌクレオチド配列の部分的分析により、他のヘルペスウィルスに見られるgI相同物に対して有意な相同関係を有するオープンリーディングフレームが明らかになった。図13および図14を参照のこと。gE遺伝子の下流に位置した、gI遺伝子およびEcoNI-SmaIフラグメントの推定5'端部を包囲している350bp SmaI-PstIフラグメントを用いて、gI/gE欠失フラグメントを構成することができた。このフラグメントは野性型ゲノムと組換え、BHV-lgI/gE欠失変異株をもたらすことができた。図16を参照のこと。理論的にはさらにまだ生成することができる80〜90アミノ酸は、抗-gI/gE抗体の欠失を防げることができる抗体を導き出すことはできないであろう。さらに、gI遺伝子の配列分析により、完全なgIコード化領域を包括するgI欠失の構成が可能となるであろう。このgI/gE二重欠失変異種をDifivac-IEと命名した。
Lam gE-およびLam gE-,TK-,BHV-1変異株菌株のワクチン特性を7週齢の、BHV-1血清反応陰性の特有病原体を持たない牛において試験した。各々の変異株を6体の牛に鼻腔内スプレーした。各牛の全投与量は、2ml培養基において105TCID50となり、2m1中1mlは各々の鼻孔にスプレーした。他の6体の牛はウィルスを含まない培養基を鼻腔内投与し非ワクチン投与対照として用いた。ワクチン投与から5週後に、ワクチン投与および非ワクチン投与いずれの牛も、すべての牛に強毒性BHV-1菌株lowa107TCID50を鼻腔内接種した。ワクチン接種および菌株接種後、臨床徴候、直腸温、体重を監視した。鼻のウィルスの放出日数の決定のために布で拭きとった鼻水を採取した。
ワクチン接種後の、牛の挙動、食欲、直腸温、発育率は正常を維持した。漿液性鼻水の分泌および鼻の粘膜の小さな傷害が、ワクチン接種牛すべてに観察された。ワクチン接種の牛の鼻から約7日間ウィルスを単離することができた(表1)。
Lam gE-およびLam gE-,TK-B、HV-1突然変異菌株は安全で、BHV-1感染予防のワクチンとして牛に用いて効能を有するものである。
BHV-1糖蛋白質gE-遺伝子の原核発現の場合、これまでのところpGEX発原ベクタ(D.B.Smith and K.S.Johnson,Gene 67(1988)31〜40)が使用されてきた。イソプロピルチオガラクトシド(IPTG)によって発現に誘導されることができる、tacプロモータの影響下にある日本住血吸虫からの担体蛋白質グルタチオンS-転移酵素(GST)についてpGEXベタタはコード化する。GST-gE融合蛋白質の例は構成pGEX-2T600s3の生成物である(図8A)。この構成において、標準的な分子生物学的技術を用いて(Sambrook et al. 1989)、gE蛋白質の200アミノ酸のN末端領域についてコード化する、600bp SmaIフラグメントがGST遺伝子の後に連結された。この構成は3つの部分から成る設計とされ、600bpフラグメントの異なったリーディングフレームがGSTに連結された。これらの構成はすべてIPTGと共に誘発された大腸菌株DH5α内に導入され、形成された蛋白質はウェスタンブロッテングによるポリアクリルアミドゲル電気泳動後、ニトロセルロースに転移させた。抗-GSTによる免疫性検出により、gE蛋白質領域についてコード化する適切なリーディングフレーム(No.3)だけが、27k(GST)t20k(gE)=47kの推定サイズの顕著な融合蛋白質の発現を導くことが実証された。Difivac-1と反応しない我々が単離した3つのモノクロナール抗体は、ウェスタンブロット中の47k D GST-gE融合蛋白質を認識する。図8B参照。
糖蛋白質gE-遺伝子の真核発現については、これまでは、とりわけ、ベクタ、pEVHisが選択されてきた。pEVHisベクタは、真核遺伝標識として、ヒスチジノールデヒドロギナーゼについてのHisD遺伝子コードを有しており〔EC1.1.1.23〕(C.Hartmann and R.Mulligan,1988,Proc,Natl.Acad Sci.USA 85,8047〜8051)、このヒスナジノールデヒドロギナーゼが、細胞の2.5mMヒスチジノールの毒性濃度を長びかせる原因となっている。さらに、このベクタは、ヒトのサイトメガにウィルス(HCMV)の即時型遺伝子のプロモータ領域を、該遺伝子の後に位置している特異な制限酵素部位と共に有している。pEVHis/gE発現ベクタの構成のためには、糖蛋白質gE-遺伝子の全コード領域を有するフラグメントが使用された。gEの従来のオープンリーティングフレームの前のAluI部位55でスタートし、その後の133bpで終了する。この領域がpEVHisベクタのHCMVプロモータの後でクローン化され、これによって構成pEVHis/gEが形成された(図9)。このpEVHis/gEを大腸菌DH5の細胞中にて増殖させ、塩化セシウム勾配法によって精製した(Sambrook et al.,1989)。この精製DNAを、Graham and Vander Ebの方法に従って、Balb/c-3T3細胞にトランスフェクトした。形質転換細胞をヒスチジノールと共に選択した結果、20の耐ヒスチジノールコロニーを単離することができた。これらのコロニーを免疫ペロキシダーゼ単分子層試験(IPMA)によって、モノクロナール抗体81によって試験した。4つのコロニ一によって、gE蛋白質の発現が証明された。これらの4つのコロニーの内、3T3gEクローン9を、高度のgE発現を有するサブクローンの単離に使用した。この方法によって単離されたクローン(3T3gE9.5と命名)を候補抗gEモノクロナール抗体の特性づけのために用いた。
BHV-1糖蛋白質gEと同一の細胞においてBHV-1糖蛋白質gIを発現させるため、まず最初にBHV-lgI遺伝子の推定位置を決めた。ヘルペス単ウィルス糖蛋白質gI遺伝子は、糖蛋白質gE遺伝子のまさに上流に位置しているので、BHV-1 gI遺伝子は、対応の位置に位置しているものと推定された。これを試験するため、BHV-1 gE位置が開始したところより約1kb上流に位置した、283ヌクレオチドの領域の配列を決定した。この領域の概念翻訳により、第2リーディングフレームは、ヘルペス単ウィルス糖蛋白質gIと相同の94アミノ酸配列についてコード化する(図13および図14参照)。相同セグメントは、スタートコドンから約80のアミノ酸であるので、BHV-1 gI遺伝子のオープンリーディングフレームの推定開始は、配列領域から約250nt上流と見積もられる。これより、配列領域から400nt上流でスタートし、gE遺伝子内で終了する、1.7kbSmalフラグメントは、BHV-lgIl遺伝子の完全なコード化領域を含んでいるべきであることが推定された。この1.7kbSmalフラグメントが真核ベクタMSV-neo内にクローン化された(図15参照)。このベクタは、強いマウス肉腫ウィルスプロモータと、抗生物質G-418硫酸ゲネティシンに対する耐性についてコード化するセレクター遺伝子neoを含んでいる。結果として生じる構成MSVneoGIが、大腸菌DH5α細胞中で増殖され、Graha and Van der Ebの方法を用いて、3T3gE9.5細胞中にトランスフェクトされた。トランスフェクトされた細胞は、400mg、ゲネティシン/ml培養基で選択され、耐性コロニーを単離し、3T3gE9.5細胞と反応しなかった候補抗-gEモノクロナール抗体で試験した。これによって、たとえば、野性型BHV-1だけでなく、モノクロナール抗体66と反応した3T3gE/gIR 20クローンを選択した。
野性型BHV-1に対してモノクロナール抗体を生成し、Difivac-1に感染したEbtr細胞との反応不能性について選択した。これらのモノクロナール抗体を下記との反応性について試験する。
a)Lam gE-欠失変異株
b)ウェスタンブロットにおける、上記の原核発現生成物
c)上記のgE発現Balb/c-3T3細胞
d)c)に記載のDifivac-1に感染した細胞
e)gE/gI複合物を発現するBa1b/c-3T3細胞
a,c,dおよびeとの反応性試験については、免疫ペロキシダーゼ単分子層試験(IPMA)を用いた。表2の結果により、我々が生成したものは、gEに対して向けられているモノクローナル抗体(2,3,4,52,66,68,72,81)およびgE/gI複合物上の立体配座抗原ドメインに対して向けられている可能性のあるモノクローナル抗体(NO.1,51,53,67,75,78)であることが判る。種々のモノクローナル抗体によって認識される抗原ドメインの地図を作るための競含IPMAにより、少なくとも4つの抗原ドメインが糖蛋白質gE上に存在すること、およびおそらく1つのドメインがgE/gI複合物により形成されることが示された(表2)。
感染した牛の血清中にgE抗体が存在しているか否かを調べるために、間接ブロッキングIPMAを16の候補gE-モノクローナル抗体に実施し、以下の8血清を選択した:
−Difivac-1のワクチン接種を受け、毒性Iowa菌株が接種された牛の菌接種14日後に採取された2血清。
−試験のためBHV-1サブタイプ1ウイルスに感染させた牛の、感染20ケ月後に採取された2血清。これらの牛のうちの一体は接触感染によって感染させた。
−試験のためBHV-1サブタイプ2bウイルスに感染させた牛の、感染20ケ月後に採取された2血清。これらの牛のうちの一体は接触感染によって感染させた。
−ts変異株ワクチンの接種を行い、3週後にBHV-1サブタイプ2bウイルスを接種させた特有病原体のない牛の、菌接種7週後に採取された1血清。
−ts異変株ワクチンの接種を行い、3週後にBHV-1サブタイプ2bウイルスを接種させた、ノトバイオートの牛の、菌接種7週後に採取された1血清。
BHV-lgE遺伝子の決定されたヌクレオチド配列からスタートして、PCRに適切なプライマの対を、Lowe et alによるプライマ選択プログラム(T. Lowe, J.Sharefkin, S, Qi Yang and C. W .Dieffenback 1990, Nucleic Acids Res, 18, 1757〜1761)を用いて選択した。これらのプライマをP3、P4と命名し、図に示した。これらのプライマは159nt離れて位置しており、200ntのフラグメントの増殖を導く。プライマP3、P4と単離されたBHV-1 DNAを用いて、PCR処置の条件を最適化した。これは特に、MgCl2の濃度の変更、グリセロール濃度、サイクル条件に関するものである。BHV-lDNAの増殖のためにP3、P4を使用するため最適と考えられる緩衝液は、10mM Tris pH 8.0, 50mM Kca1, 0.01%ゼラチン, 2.6mM MgC12および20%グリセロールである。最適のサイクル条件と考えられるものは(Perkin Elber Cetus DNA Thermal Cycler),サイクル1〜51については、1分98℃, 30秒96℃, 30秒55℃, 45秒72℃である。PCR増殖後、得られた200ntDNAフラグメントを2%アガロースゲル上で電気泳動にかけ、ニトロセルロースにブロットし、続いてサザンブロット分析を行った。サザンブロット分析に使用された32P dCTPのラベルが貼られたプローブが、プライマ結合部位間に位置している137bp TagIフラグメントである(図10)。ハイブリッドフィルターの自動X線撮影により、200bpバンドを観察することができた。さらに、このルートを介して、10BHV-1ゲノムだけの増殖(約1.5×10⁻¹⁵μgDNA)が検出可能と思われる信号を導く(結果は示されていない)。同等の方法で、BHV-1糖蛋白質gIIIのコード化配列(D.R.Fitrpatrick, L.A. Babiuk and T.Zamb, 1989,, Virolagy 173, 46〜57)に基づくプライマを用いてPCR処置を行った。野生型BHV-1 DNAとgE欠失変異株ワクチンの区別を可能とするために、DNA試料にgE-特有PCR分析およびgIII-特有PCR分析の両分析を行った。このような試験において、Difivac-1DNA調製物はgIII陽性およびgE陰性であることが判った。ウシの精液中のBHV-lDNAの検出は、BHV-1特有PCR処置の重要な用途であると思われるので、BHV-1に感染したウシの精液にgE-特有PCRの実施を試みた。しかしながら、精液中の未知の成分がポリメラーゼ連鎖反応に強い抑制効果を有している。したがって、ウシの精液からBHV-1 DNAを単離するプロトコールが展開された。ウシの精液からDNAを単離するため、30μ1の精液を、1mg/m1プロティナーゼK(pk)とともに、60℃にて、全量300μ1の0.15M NaC1, 0.5%Na-サルコシル, 40mM DTT中にて培養する。1時間後、試料を室温にまで冷却し、300μl 6M NaIを添加し、5分間培養する。この混合物より、標準クロロホルム/イソアミルエタノール抽出によりDNAを単離し、1容量のイソプロパノールで沈殿させた。沈殿物を2.5M NH4AC/70%エタノールで洗浄し、60℃にて1時間10mM Tris pH7.4,1mM EDTA,0.5%Tween80および0.1mg/mlpk中で、第2培養のために再懸濁する。このDNA調製物は直接ポリメラーゼ連鎖反応下に置くことができる。
Claims (26)
- 糖蛋白質gE-遺伝子中に欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中に減衰手段によって起こる欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中に減衰手段によって起こり、Difivac-1である欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中に再結合DNA技術によって起こる欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中に再結合DNA技術によって起こり、IB7または1B8である欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中と、チミジンキナーゼ遺伝子中とに欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中と、同じくgI-遺伝子中とに欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中と、チミジンキナーゼ遺伝子中と、糖蛋白質gI-遺伝子中とに欠失を有する1型ウシヘルペスウイルスの欠失突然変異株。
- 糖蛋白質gE-遺伝子中に欠失を有し、再結合DNA技術によって誘導される非対称遺伝子を含む1型ウシヘルペスウイルスの突然変異株。
- 糖蛋白質gE-遺伝子の位置に、再結合DNA技術によって誘導され、調節した配列、たとえばgE-遺伝子または非対称遺伝子の制御下にあり、ペプチド信号のためコード化されたgE-遺伝子の部分に随意に接触させられる非対称遺伝子を含む1型ウシヘルペスウイルスの突然変異株。
- 糖蛋白質gE-遺伝子中にある欠失に加えて、チミジンキナーゼ遺伝子中と、糖蛋白質gI-遺伝子中との一方または双方に欠失を有し、再結合DNA技術によって、前記欠失の少なくとも1つの位置に誘導される非対称遺伝子を含む1型ウシヘルペスウイルスの突然変異株。
- 糖蛋白質gE-遺伝子中に欠失を有し、再結合DNA技術で誘導され、他の病原菌の免疫原蛋白質のためと、サイドカインのためとにコード化された非対称遺伝子を含む1型ウシヘルペスウイルスの突然変異株。
- 1型ウシヘルペスウイルスの糖蛋白質gE-遺伝子を含む再結合核酸、この糖蛋白質gE-遺伝子の一部またはこの糖蛋白質gE-遺伝子から誘導されるヌタレオチド配列から成る組成物。
- 1型ウシヘルペスウイルスの糖蛋白質gE-遺伝子を含む再結合核酸、この糖蛋白質gE-遺伝子の一部または、この糖蛋白質gE-遺伝子から誘導されるヌクレオチド配列を挿入するクローンまたは表現ベタタから成る組成物。
- 1型ウシヘルペスウイルスの糖蛋白質gE、この糖蛋白質gEの一部、この糖蛋白質gEから誘導されるペプチドまたは1型ウシヘルペスウイルス糖蛋白質gEと同gIとの複合物から成る組成物。
- 1型ウシヘルペスウイルスの糖蛋白質、この糖蛋白質gEの一部、この糖蛋白質gEから誘導されたペプチドまたは1型ウシヘルペスウイルス糖蛋白質gEおよび同gIの複合物に特有の組成物。
- 1型ウシヘルペスウイルスの糖蛋白質、この糖蛋白質gEの一部、この糖蛋白質gEから誘導されたペプチドまたは1型ウシヘルペスウイルス糖蛋白質gEおよび同gIの複合物に特有のモノクロナール抗体から成る組成物。
- 1型ウシヘルペスウイルスの糖蛋白質、この糖蛋白質gEの一部、この糖蛋白質gEから誘導されたペプチドまたは1型ウシヘルペスウイルス糖蛋白質gEおよび同gIの複合物に特有のボリクロナール抗体から成る組成物。
- 1型ウシヘルペスウイルスに対して動物を保護するために、動物、好ましくは哺乳動物、さらに好ましくはウシ科の動物に接種するための請求項1〜12のいずれか1項に記載の1型ウシヘルペスウイルスの欠失から成るワクチン組成物とそれに適する担体と免疫助成剤。
- 病原菌に対して動物を保護するために、動物、好ましくは哺乳動物、さらに好ましくはウシ科の動物に接種するための糖蛋白質gE-遺伝子中に欠失を有し、再結合DNA技術によって誘導され、病原菌の免疫原蛋白質またはペプチドのためにコード化された非対称遺伝子を含む1型ウシヘルペスウイルスの欠失から成るワクチン組成物とそれに適する担体と免疫助成剤。
- 動物、好ましくは哺乳動物、さらに好ましくはウシ科の動物から得られる試料、特に血液、血清、血液細胞、乳、涙のような体液、肺洗浄液、鼻水、精液、特に精漿、痰、または、組織、特に神経組織のような生体試料の中で、1型ウシヘルペスウイルスの糖蛋白質gE-遺伝子から誘導されたヌタレオチド配列を有する核酸プローブまたはプライマから成り、1型ウシヘルペスウイルスの核酸を検出するための診断キットおよび核酸を分析するために適する検出方法。
- 動物、好ましくは哺乳動物、さらに好ましくはウシ科の動物から得られる試料、特に血液、血清、唾液、痰、涙のような体液、肺洗浄液、鼻水、乳または組織のような生体試料の中で、BHV-1の糖蛋白質gE、この糖蛋白質gEの一部、この糖蛋白質gEから誘導されるペプチド、または1型ウシヘルペスウイルス糖蛋白質gEおよび同gIの複合物から成り、1型ウシヘルペスウイルスに特有の抗体を検出するための診断キットおよび抗体を分析するために適する検出方法。
- 1型ウシヘルペスウイルス糖蛋白質gEまたは1型ウシヘルペスウイルス糖蛋白質gEおよび同gIの複合物に特有の1またはそれ以上の抗体から成る請求項22記載の診断キット。
- 動物、好ましくは哺乳動物、さらに好ましくはウシ科の動物から得られる試料、特に血液、血清、血液細胞、乳、涙のような体液、肺洗浄液、鼻水、精液、特に精漿、唾液、痰、または組織、特に神経組織のような生体試料の中で、1型ウシヘルペスウイルスの糖蛋白質gE、または1型ウシヘルペスウイルスgEおよび同gIの複合物に特有の抗体から成り、1型ウシヘルペスウイルスの蛋白質を検出するための診断キットおよび蛋白質を分析するために適する検出方法。
- 動物由来の試料、特に血液、血清、血液細胞、精液、特に精漿、唾液、痰、涙のような体液、肺洗浄液、鼻水、乳、組織、特に神経組織のような生体試料を試験することと、1型ウシヘルペスウイルスの糖蛋白質gE-遺伝子から成る核酸の存在、または1型ウシヘルペスウイルス糖蛋白質gEもしくは1型ウシヘルペスウイルス糖蛋白質gEと同gIとの複合物の存在、または1型ウシヘルペスウイルスの糖蛋白質もしくは1型ウシヘルペスウイルス糖蛋白質gEと同gIの複合物のための特有の抗体の存在を試験することとから成る1型ウシヘルペスウイルスに感染した動物、好ましくは哺乳動物、さらに好ましくはウシ科の動物を決める方法。
- 動物由来の試料、特に血液、血清、血液細胞、精液、特に精漿、唾液、痰、涙のような体液、肺洗浄液、鼻水、乳、組織、特に神経組織のような生体試料を試験することと、1型ウシヘルペスウイルスの糖蛋白質gE-遺伝子から成る核酸の存在、または1型ウシヘルペスウイルス糖蛋白質gEもしくは1型ウシヘルペスウイルス糖蛋白質gEと同gIとの複合物の存在、または1型ウシヘルペスウイルスの糖蛋白質もしくは1型ウシヘルペスウイルス糖蛋白質gEと同gIの複合物に特有の抗体の存在を試験することと、請求項19によって準備されたワクチンを接種した動物から得られた試料を試験することとから成る1型ウシヘルペスウイルスに感染した動物、好ましくは哺乳動物、さらに好ましくはウシ科の動物を決める方法。
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| NL9100989A NL9100989A (nl) | 1991-06-07 | 1991-06-07 | Bovine herpesvirus type 1 deletiemutanten, daarop gebaseerde vaccins, diagnostische kits voor detectie van bovine herpesvirus type 1. |
Related Parent Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP5500368A Division JPH06508032A (ja) | 1991-06-07 | 1992-06-05 | 1型ウシヘルペスウイルスの欠失突然変異株、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット |
Related Child Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2009268316A Division JP2010104367A (ja) | 1991-06-07 | 2009-11-26 | 1型ウシヘルペスウイルスの欠失突然変異体、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2006296426A true JP2006296426A (ja) | 2006-11-02 |
| JP4486055B2 JP4486055B2 (ja) | 2010-06-23 |
Family
ID=19859344
Family Applications (3)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP5500368A Pending JPH06508032A (ja) | 1991-06-07 | 1992-06-05 | 1型ウシヘルペスウイルスの欠失突然変異株、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット |
| JP2006109215A Expired - Lifetime JP4486055B2 (ja) | 1991-06-07 | 2006-04-11 | 1型ウシヘルペスウイルスの欠失突然変異体、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット |
| JP2009268316A Pending JP2010104367A (ja) | 1991-06-07 | 2009-11-26 | 1型ウシヘルペスウイルスの欠失突然変異体、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット |
Family Applications Before (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP5500368A Pending JPH06508032A (ja) | 1991-06-07 | 1992-06-05 | 1型ウシヘルペスウイルスの欠失突然変異株、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット |
Family Applications After (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2009268316A Pending JP2010104367A (ja) | 1991-06-07 | 2009-11-26 | 1型ウシヘルペスウイルスの欠失突然変異体、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット |
Country Status (20)
| Country | Link |
|---|---|
| US (3) | US5676951A (ja) |
| EP (1) | EP0587805B2 (ja) |
| JP (3) | JPH06508032A (ja) |
| KR (1) | KR100293761B1 (ja) |
| AT (1) | ATE143412T1 (ja) |
| AU (1) | AU671802B2 (ja) |
| CA (1) | CA2110519C (ja) |
| CZ (1) | CZ283283B6 (ja) |
| DE (1) | DE69214146T3 (ja) |
| DK (1) | DK0587805T4 (ja) |
| ES (1) | ES2097340T5 (ja) |
| FI (1) | FI110060B (ja) |
| GR (1) | GR3022138T3 (ja) |
| HU (1) | HU219602B (ja) |
| NL (1) | NL9100989A (ja) |
| NO (2) | NO934431L (ja) |
| RU (1) | RU2170254C2 (ja) |
| SK (1) | SK280862B6 (ja) |
| UA (1) | UA40571C2 (ja) |
| WO (1) | WO1992021751A1 (ja) |
Families Citing this family (26)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US6410033B1 (en) | 1987-07-27 | 2002-06-25 | Syntro Corporation | Recombinant infectious bovine rhinotracheitis virus |
| US5783195A (en) * | 1991-07-18 | 1998-07-21 | Syntro Corporation | Recombinant infectious bovine rhinotracheitis virus S-IBR-052 and uses thereof |
| FR2693472B1 (fr) * | 1992-06-26 | 1994-12-23 | Rhone Merieux | Mutants du virus de la rhinotrachéite infectieuse bovine, délétés dans l'un des gènes des glycoprotéines mineures, vaccins préparés à partir de ces souches, méthodes de production et méthodes d'utilisation. |
| WO1992006989A1 (en) * | 1990-10-04 | 1992-04-30 | Research Corporation Technologies, Inc. | Varicella-zoster virus antigen |
| NL9100989A (nl) * | 1991-06-07 | 1993-01-04 | Stichting Centr Diergeneeskund | Bovine herpesvirus type 1 deletiemutanten, daarop gebaseerde vaccins, diagnostische kits voor detectie van bovine herpesvirus type 1. |
| CA2113641A1 (en) * | 1991-07-18 | 1993-02-04 | Mark D. Cochran | Recombinant infectious bovine rhinotracheitis virus |
| DE4141400A1 (de) * | 1991-12-16 | 1993-06-17 | Bayer Ag | Impfstoffe auf basis geaenderter boviner herpesviren typ 1 |
| WO1993019188A1 (en) * | 1992-03-20 | 1993-09-30 | MAX-PLANCK-Gesellschaft zur Förderung der Wissenschaften e.V. | Fungus-responsive chimaeric gene |
| WO1994024296A2 (en) * | 1993-04-19 | 1994-10-27 | University Of Saskatchewan | Recombinant bovine herpesvirus type 1 vaccines |
| CA2136381A1 (en) * | 1993-11-23 | 1995-05-24 | Gunther Keil | Vector vaccines of bovine herpesvirus 1 |
| ES2074965B1 (es) * | 1994-01-31 | 1996-05-01 | Hipra Lab Sa | Virus mutante recombinante de rinotraqueitis infecciosa bovina y vacunas que lo contienen. |
| ES2088371B1 (es) * | 1995-02-01 | 1997-04-16 | Hipra Lab Sa | Procedimiento para la produccion en forma recombinante de antigenos de la glicoproteina ge de herpesvirus bovino tipo 1 y su uso en la diferenciacion serologica entre animales infectados y animales vacunados. |
| US6284251B1 (en) * | 1996-02-26 | 2001-09-04 | Kansas State University Research Foundation | BHV-1 gene-deleted virus vaccine |
| US6221360B1 (en) * | 1996-02-26 | 2001-04-24 | Kansas State University Research Foundation | Infectious bovine rhinotracheitis vaccines and methods |
| EP1170367A1 (en) | 2000-06-27 | 2002-01-09 | Bayer Ag | BVDV virus-like particles |
| US6935866B2 (en) * | 2002-04-02 | 2005-08-30 | Adc Telecommunications, Inc. | Card edge coaxial connector |
| CA2515978A1 (en) | 2003-02-19 | 2004-09-02 | Merial Limited | Vaccination or immunization using a prime-boost regimen against bhv-1 |
| CA2693137C (en) * | 2007-07-19 | 2014-04-08 | Azad Kumar Kaushik | Engineered scfv against bovine herpes virus type i |
| EP2108375A1 (de) * | 2008-04-10 | 2009-10-14 | Riemser Arzneimittel AG | Lebendimpfstoffzusammensetzung |
| CN102649948B (zh) * | 2011-02-23 | 2016-05-25 | 华中农业大学 | 牛传染性鼻气管炎ΔTK/ΔgE基因缺失标志活疫苗及制备方法 |
| US8877211B2 (en) | 2011-06-27 | 2014-11-04 | Board Of Supervisors Of Louisiana State University And Agricultural And Mechanical College | Bovine herpes virus vaccine with multiple mutations |
| BR112014033067A2 (pt) * | 2011-07-05 | 2017-08-01 | Australian Meat & Live Stock | vacina, método para produzir uma vacina, uso de uma vacina, e, célula transgênica |
| CN105368791A (zh) * | 2014-02-21 | 2016-03-02 | 普莱柯生物工程股份有限公司 | 一种猪伪狂犬病病毒基因缺失株、疫苗组合物及其制备方法和应用 |
| EP2942628A1 (en) | 2014-05-08 | 2015-11-11 | In3diagnostic S.r.l. | Kit and in vitro method for identifying Bovine Herpes Virus 1 infections |
| EP3779445A1 (en) | 2014-08-01 | 2021-02-17 | Board of Supervisors of Louisiana State University and Agricultural and Mechanical College | Bovine herpesvirus detection and treatment |
| EP4179076A4 (en) * | 2020-07-10 | 2024-08-07 | McMaster University | GENETICALLY MODIFIED BOVINE HERPESVIRUS TYPE 1 (BHV-1) FOR USE IN TREATING CANCER |
Family Cites Families (7)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4703011A (en) * | 1985-11-12 | 1987-10-27 | Novagene, Inc. | Thymidine kinase deletion mutants of bovine herpesvirus-1 |
| US5593873A (en) * | 1986-01-27 | 1997-01-14 | Syntro Corporation | Recombinant infectious bovine rhinotracheitis virus |
| US4992051A (en) * | 1987-11-03 | 1991-02-12 | Novagene, Inc. | Infectious bovine rhinotracheitis virus mutants, methods for the production of same and methods for the use of same |
| EP0326127A3 (en) * | 1988-01-26 | 1990-03-28 | Novagene, Inc. | Infectious bovine rhinotracheitis virus insertion mutants, vaccins containing same, and methods for the production and use of same |
| WO1989010965A2 (en) * | 1988-05-03 | 1989-11-16 | The Upjohn Company | Glycoprotein h of herpes viruses |
| NL9100989A (nl) * | 1991-06-07 | 1993-01-04 | Stichting Centr Diergeneeskund | Bovine herpesvirus type 1 deletiemutanten, daarop gebaseerde vaccins, diagnostische kits voor detectie van bovine herpesvirus type 1. |
| DE4141400A1 (de) * | 1991-12-16 | 1993-06-17 | Bayer Ag | Impfstoffe auf basis geaenderter boviner herpesviren typ 1 |
-
1991
- 1991-06-07 NL NL9100989A patent/NL9100989A/nl not_active Application Discontinuation
-
1992
- 1992-06-05 RU RU93058614/13A patent/RU2170254C2/ru active
- 1992-06-05 HU HU9303470A patent/HU219602B/hu unknown
- 1992-06-05 KR KR1019930703773A patent/KR100293761B1/ko not_active Expired - Lifetime
- 1992-06-05 EP EP92914642A patent/EP0587805B2/en not_active Expired - Lifetime
- 1992-06-05 UA UA93004426A patent/UA40571C2/uk unknown
- 1992-06-05 DE DE69214146T patent/DE69214146T3/de not_active Expired - Lifetime
- 1992-06-05 US US08/150,203 patent/US5676951A/en not_active Expired - Lifetime
- 1992-06-05 ES ES92914642T patent/ES2097340T5/es not_active Expired - Lifetime
- 1992-06-05 SK SK1375-93A patent/SK280862B6/sk not_active IP Right Cessation
- 1992-06-05 CA CA002110519A patent/CA2110519C/en not_active Expired - Lifetime
- 1992-06-05 AU AU22750/92A patent/AU671802B2/en not_active Expired
- 1992-06-05 AT AT92914642T patent/ATE143412T1/de active
- 1992-06-05 WO PCT/NL1992/000097 patent/WO1992021751A1/en not_active Ceased
- 1992-06-05 JP JP5500368A patent/JPH06508032A/ja active Pending
- 1992-06-05 CZ CS932646A patent/CZ283283B6/cs not_active IP Right Cessation
- 1992-06-05 DK DK92914642T patent/DK0587805T4/da active
-
1993
- 1993-12-06 NO NO934431A patent/NO934431L/no unknown
- 1993-12-06 NO NO934431D patent/NO934431D0/no unknown
- 1993-12-07 FI FI935459A patent/FI110060B/fi not_active IP Right Cessation
-
1995
- 1995-05-31 US US08/454,730 patent/US5789177A/en not_active Expired - Lifetime
-
1996
- 1996-12-23 GR GR960403580T patent/GR3022138T3/el unknown
-
1997
- 1997-10-14 US US08/949,788 patent/US6403097B1/en not_active Expired - Lifetime
-
2006
- 2006-04-11 JP JP2006109215A patent/JP4486055B2/ja not_active Expired - Lifetime
-
2009
- 2009-11-26 JP JP2009268316A patent/JP2010104367A/ja active Pending
Also Published As
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| JP4486055B2 (ja) | 1型ウシヘルペスウイルスの欠失突然変異体、それに基づくワクチンおよび1型ウシヘルペスウイルスを検出するためのキット | |
| JP3254128B2 (ja) | Hcmvの糖タンパク質に対する抗体の産生法 | |
| AU623333B2 (en) | Attenuated herpesviruses, herpesviruses which include foreign dna encoding an amino acid sequence and vaccine containing same | |
| EP0658623A2 (en) | Attenuated herpesviruses, herpesviruses which include foreign DNA encoding an amino acid sequence and vaccines containing same | |
| JP2003180385A (ja) | コロナウイルスに対するワクチン接種用組成物および方法 | |
| US6162620A (en) | Processes for the production of HCMV glycoproteins, antibodies thereto and HCMV vaccines, and recombinant vectors therefor | |
| US5807557A (en) | Soluble herpesvirus glycoprotein complex | |
| IE922829A1 (en) | Bovine herpesvirus type 1 deletion mutants, vaccines based¹thereon, diagnostic kits for detection of bovine herpesvirus¹type 1 | |
| NZ245219A (en) | Bovine herpesvirus type 1 deletion mutants, vaccines against them and diagnostic kits for detecting bovine herpes virus type 1 | |
| IE83654B1 (en) | Bovine herpesvirus type I deletion mutants, vaccines based thereon, diagnostic kits for detection of bovine herpesvirus type I | |
| EP1438969A1 (en) | Arterivirus marker vaccine | |
| PT100810A (pt) | Mutantes de deleccao do virus de herpes bovino tipo 1, vacinas a base desses mutantes e equipamentos de diagnostico para a deteccao de virus do herpes bovino tipo 1 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20061004 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20061222 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20061227 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20070404 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20070919 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20071213 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20071218 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20080117 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20080122 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20080218 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20080221 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20080318 |
|
| A02 | Decision of refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A02 Effective date: 20090730 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20091126 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20100113 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20091228 |
|
| A911 | Transfer to examiner for re-examination before appeal (zenchi) |
Free format text: JAPANESE INTERMEDIATE CODE: A911 Effective date: 20100126 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20100303 |
|
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20100325 |
|
| R150 | Certificate of patent or registration of utility model |
Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130402 Year of fee payment: 3 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130402 Year of fee payment: 3 |
|
| S111 | Request for change of ownership or part of ownership |
Free format text: JAPANESE INTERMEDIATE CODE: R313111 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130402 Year of fee payment: 3 |
|
| R360 | Written notification for declining of transfer of rights |
Free format text: JAPANESE INTERMEDIATE CODE: R360 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130402 Year of fee payment: 3 |
|
| R370 | Written measure of declining of transfer procedure |
Free format text: JAPANESE INTERMEDIATE CODE: R370 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130402 Year of fee payment: 3 |
|
| S111 | Request for change of ownership or part of ownership |
Free format text: JAPANESE INTERMEDIATE CODE: R313111 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130402 Year of fee payment: 3 |
|
| R350 | Written notification of registration of transfer |
Free format text: JAPANESE INTERMEDIATE CODE: R350 |
|
| EXPY | Cancellation because of completion of term | ||
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130402 Year of fee payment: 3 |