JP2006296429A - 新規なポリペプチド及びそれをコードする遺伝子 - Google Patents
新規なポリペプチド及びそれをコードする遺伝子 Download PDFInfo
- Publication number
- JP2006296429A JP2006296429A JP2006123920A JP2006123920A JP2006296429A JP 2006296429 A JP2006296429 A JP 2006296429A JP 2006123920 A JP2006123920 A JP 2006123920A JP 2006123920 A JP2006123920 A JP 2006123920A JP 2006296429 A JP2006296429 A JP 2006296429A
- Authority
- JP
- Japan
- Prior art keywords
- gene
- chm1l
- polypeptide
- seq
- amino acid
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Pending
Links
Images

Landscapes
- Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
- Medicines Containing Antibodies Or Antigens For Use As Internal Diagnostic Agents (AREA)
- Pharmaceuticals Containing Other Organic And Inorganic Compounds (AREA)
- Peptides Or Proteins (AREA)
Abstract
【課題】コンドロモジュリン−Iに類似した新たなポリペプチド及びそれをコードする遺伝子の提供。
【解決手段】ヒト、マウス及びラットcDNAライブラリーより遺伝子を単離することにより特定のアミノ酸配列を有するポリペプチド及びそれをコードするDNA、並びに該ポリペプチドに対する抗体を得た。上記アミノ酸配列は、軟骨細胞の増殖・分化の調節及び血管新生阻害作用を有するコンドロモジュリン−Iに対して相同性を有する。
【選択図】なし
【解決手段】ヒト、マウス及びラットcDNAライブラリーより遺伝子を単離することにより特定のアミノ酸配列を有するポリペプチド及びそれをコードするDNA、並びに該ポリペプチドに対する抗体を得た。上記アミノ酸配列は、軟骨細胞の増殖・分化の調節及び血管新生阻害作用を有するコンドロモジュリン−Iに対して相同性を有する。
【選択図】なし
Description
本発明は、軟骨細胞の増殖・分化を調節し、血管新生阻害作用を有することが知られているChondromodulin−I(ChM−I)とアミノ酸配列に相同性が認められる新規なヒト、マウス及びラットポリペプチド、並びにそれをコードするヒト、マウス及びラット遺伝子(以下、「ChM1L遺伝子」と略記することがある)に関する。
哺乳類の大部分の骨は、軟骨細胞の増殖、分化を経て石灰化が起こり、最後は骨に置換する、いわゆる「内軟骨骨化」という仕組みによって作られる。この一連の過程には種々のホルモンや成長因子が関与しており、インスリン様増殖因子(IGF1、IGF2)、線維芽細胞増殖因子(FGF)、癌細胞増殖因子(TGF)、成長ホルモンなどが知られている。開らは、前記ホルモンや成長因子の他に軟骨細胞の増殖、分化機能を促進する因子としてChM−I遺伝子を単離した(Biochem.Biophys.Res.Commun.,175,971−977,1991、欧州公開特許第473080号公報)。ヒトChM−Iは334アミノ酸残基からなるII型の膜タンパク質として合成され、糖鎖修飾の後、プロセシングを受けて120アミノ酸残基で構成されるC末端部分が細胞外に分泌される(Hirakiet al,Eur.J.Biochem.260,869−878,1999)。ChM−Iは培養軟骨細胞の増殖を促進するのみならず、プロテオグリカン合成、アガロース中での軟骨細胞のコロニー形成を強力に促進する(Inoueet al,Biochem.Biophys.Res.Commun.,241,395−400,1997)。また、ChM−Iは軟骨だけでなく骨芽細胞の増殖をも促進する(Moriet al,FEBS Letters,406 310−314,1997)。
一方、軟骨は無血管組織であるばかりでなく血管侵入に対して抵抗性を示すことは古くから指摘されてきた。開らは、軟骨組織抽出物から血管内皮細胞に対する増殖抑制因子の精製を試み、その完全精製に成功した。その結果、これがChM−Iであることが判明した(Hirakiet al,FEBS Letter,415,321−324,1997、Hirakiet al,J.Biol.Chem.,272,32419−32426,1997)。軟骨組織は、通常、無血管に保たれているのが特徴であるが、骨組織への置換には軟骨組織への血管侵入が必要であると考えられている。一次骨化中心の形成を準備する血管侵入に先立って、予定血管侵入領域では、軟骨細胞の肥大化と軟骨基質の石灰化がおこる。ChM−Iは肥大化軟骨とこれに続く石灰化軟骨の出現領域で、劇的に発現が消失する。すなわち、ChM−I遺伝子の発現は軟骨特異的であるが、血管侵入に抵抗性を示す無血管軟骨に限局されていることになる。既に述べたように、ChM−Iは、軟骨の増殖と分化成熟を促進するのみならず、血管内皮細胞の増殖阻害により血管侵入を抑制するのではないかと考えられる。従って、無血管軟骨での発現と血管侵入に先立つ石灰化層での発現消失は、ChM−Iのbifunctionalな作用とよく一致している。
また、軟骨組織には強力な血管新生促進因子であるbFGFがpericellularspaceに多量に蓄積されているが、ChM−IはbFGFを取り囲むようにしてinterterritorial spaceに存在することが明らかにされている(Hiraki et al,J.Biol.Chem.,272,32419−32426,1997)。すなわち、無血管軟骨では、ChM−Iが血管新生促進因子をマスクするような形で存在しており、ChM−Iの血管新生阻害作用は軟骨に血管が存在しないことを説明し得るものであると考えられている(蛋白質核酸 酵素 Vol.40 No.5.1995)。また、ChM−Iは、in vivoにおいてヒト腫瘍細胞への血管侵入を阻害して、癌細胞の増殖を抑制することが確かめられている(Hayamiet al,FEBS Letters,458,436−440,1999)。マウスの各組織におけるChM−IのmRNAの発現解析から、ChM−Iは軟骨以外にも眼と胸腺で発現していることが明らかとなったが、これらの組織におけるChM−Iの機能に関してはいまだ未知である(Shukunamiet al,Int.J.Dev.Biol.43,39−49,1999)。
骨折の治癒、各種軟骨疾患の治癒過程には軟骨細胞の増殖、分化機能の発現が重要である。従って、軟骨細胞の増殖と分化を促進する因子であるChM−Iは、軟骨細胞増殖剤としての応用が期待されている(特開平7−138295号公報)。癌細胞の増殖、転移においては、エネルギー獲得のために組織内への血管侵入が必須である。従って、血管新生阻害作用を有するChM−Iは抗腫瘍剤としての応用も期待されている(特開平7−138295号公報)。以上のように、ChM−Iは、軟骨細胞の増殖・分化を制御すると共に、血管新生阻害作用をも有する分子であり、その機能から医薬品への応用が期待されている。
近年、バイオテクノロジーは急速な進歩を続けており、ヒトゲノムプロジェクトの進行とも関連して、大量の新規遺伝子がクローニングされている。ヒト遺伝子は、約10万個存在すると言われているが、その中にはアミノ酸配列に相同性が認められる分子群がファミリーを形成している場合がある。アミノ酸配列に相同性が認められる分子群としては、TNFファミリー、TNFレセプターファミリー、ケモカイン及びG−proteincoupled receptorなど多種の遺伝子ファミリーが存在することが知られている。例えば、TNFファミリーに属する分子としては、Tumornecrosis factor α(TNFα、Pennicaet al,Nature 312,724,1984)、Fasligand(FasL、Suda et al,Cell 75,1167,1993)、TNF−related apoptosis−inducingligand(TRAIL、Steven et al,Immmunity 3,673,1995)及びB lymphocyte stimulator(BLYS、Moore et al,Science 285,260−263,1999)など、約20種類存在することが知られている。
TNFファミリーに属する分子は、II型の膜タンパク質であり、細胞外領域にアミノ酸配列上の相同性が認められる。これらの分子は、アミノ酸配列に相同性が認められるものの、それぞれの分子は固有の機能を有することが明らかにされており、さまざまな疾患に対して医薬品としての適用が試みられている。また、TNFファミリーの分子にはそれぞれ固有のレセプターが存在することが明らかにされており、これらのレセプターも医薬品としての適用が試みられており、実際に医薬品として認可されたものも存在する(例:可溶性TNF受容体,Immunex社)。また、これらの分子に対する抗体も医薬品としての研究開発が進められており、実際に医薬品として承認されたものも存在する(例:抗TNFα抗体、Centocore社)。アミノ酸配列に相同性が認められる分子を医薬品開発へ応用した例として、TNFファミリー及びTNFレセプターファミリーを上記に例として示した。これらの分子の医薬品への応用を可能にした背景には、それぞれの分子の機能解析が実施され、その類似性と差異が明らかにされたことが挙げられる。
また、TNFファミリーの分子は、II型の膜タンパク構造を有する分子であり、主に、血液系、リンパ系の細胞に発現しているものが多いため、実験手法や材料面では共有できる部分が多い。従って、TNFファミリーに属する新規遺伝子が発見された場合には、その機能解析の速度は初期に発見された分子よりも加速したものと思われる。このように、アミノ酸配列に相同性を有する新規遺伝子を発見し、その機能解析を実施することは、今後発見される新規遺伝子の機能解析の一助となるのみならず、その解析結果により、既知の分子との比較を行うことができるため、既知の分子の機能に関してもより詳細な知見が得られると考えられる。
一般に、既知の分子とアミノ酸配列に相同性が認められるタンパク質をコードする新規遺伝子をクローニングした場合には、機能解析に用いる技術や材料は既知の分子の例を参考にすることができる。しかし、アミノ酸配列に相同性が認められる分子であっても、上記のTNFファミリーのように、それぞれの分子は固有の機能を有していると考えられるため、医薬品への応用を考えた場合には、リコンビナントタンパク質の発現と精製、抗体の作製、各種組織でのmRNA及びタンパク質の発現等を明確にし、既知の分子との構造及び機能面での違いを明らかにすることが必要である。
従って、本発明は、ChM−Iに類似した新たなポリペプチド及びそれをコードする遺伝子を提供することを目的としている。また、本発明においては、該ポリペプチドに対する抗体の作製、各種組織での該遺伝子及びポリペプチドの発現レベルの解析、リコンビナントタンパク質の発現及び構造解析などを実施して、ChM−Iとの類似性と差異を明らかにするとともに、機能を解明し、これらの関与する疾患の病態解明や診断、治療等を可能にすることを目的としている。
ChM−Iは、軟骨細胞の増殖・分化を調節し、血管新生阻害作用を有するII型の膜タンパク質であり、医薬品への応用が期待されている分子である。従って、ChM−Iに類似した新たなポリペプチドをコードする遺伝子が提供できれば、その各種細胞での発現レベルや構造及び機能を解析でき、またその発現物の解析等によりこれらの関与する疾患の病態解明や診断、治療等が可能となると考えられる。しかしながら、現在のところChM−Iのアミノ酸配列と相同性を示す分子の報告はなく、ChM−Iが遺伝子ファミリーを構成しているのかどうかは不明である。従って、ChM−Iに類似した新たなポリペプチド及びそれをコードする遺伝子の存在が明らかになれば、その構造及び機能等の解析により、ChM−Iとの類似性及び相違性を検討することが可能となり、互いの分子の生理的な機能の解明及びこれらの分子が関与する病態の解明、診断及び治療薬の開発等を加速することも期待される。
本発明者らは、上記目的より鋭意研究を重ねた結果、ヒト、マウス及びラットcDNAライブラリーより新たに、上記目的に合致する遺伝子(ChM1L遺伝子)を単離することに成功し、その各組織での発現レベルの解析、該ポリペプチドに対する抗体の作製、該遺伝子がコードするポリペプチドの哺乳動物細胞での発現、検出及び精製などを実施し、該ポリペプチドが血管新生阻害作用を有することを明らかにして、ここに本発明を完成するに至った。
即ち、本発明は配列番号2、4及び6で表されるアミノ酸配列を実質的に含むポリペプチドをコードする遺伝子である。上記遺伝子としては、例えば配列番号1、3及び5で表される塩基配列が挙げられる。
さらに、本発明は、配列番号2、4及び6で表されるアミノ酸配列を実質的に含む、ヒト、マウス及びラット遺伝子がコードするポリペプチドである。
さらに、本発明は、前記遺伝子の少なくとも一部とハイブリダイズするオリゴヌクレオチドプローブである。
さらに、本発明は、前記遺伝子を含む組換え体DNAである。
さらに、本発明は、前記組換え体DNAによって形質転換された形質転換体である。
さらに、本発明は、前記形質転換体を培養し、得られる培養物から本発明遺伝子がコードするポリペプチドを採取することを特徴とする前記ポリペプチドの製造方法である。
さらに、本発明は、前記ポリペプチドと特異的に反応するモノクローナル抗体またはポリクローナル抗体である。
さらに、本発明は、前記ポリペプチドで免疫された抗体産生細胞とミエローマ細胞とを融合させることにより得られる、前記モノクローナル抗体を産生するハイブリドーマである。
さらに、本発明は、前記オリゴヌクレオチドプローブを含む遺伝子の検出試薬である。
さらに、本発明は、前記ポリペプチド、及び前記モノクローナル抗体又はポリクローナル抗体を含む診断キットである。
さらに、本発明は、配列番号2、4または6で表されるアミノ酸配列を実質的に含む遺伝子がコードするポリペプチドからなる医薬組成物である。
さらに、本発明は、上記ポリペプチドと特異的に反応するモノクローナル抗体もしくはポリクローナル抗体からなる医薬組成物である。
さらに、本発明は、前記の遺伝子の一部と特異的にハイブリダイズするアンチセンスオリゴヌクレオチドからなる医薬組成物である。
さらに、本発明は、前記の遺伝子の少なくとも一部を含む、遺伝子治療に利用しうる核酸からなる医薬組成物である。
さらに、本発明は、前記のポリペプチドが細胞膜結合型であることを特徴とするポリペプチドである。
さらに、本発明は、前記の細胞膜結合型ポリペプチドをコードする遺伝子である。
さらに、本発明は、前記のヒト遺伝子がX染色体に存在することを特徴とする遺伝子である。
さらに、本発明は、前記のポリペプチドが血管新生阻害作用を有することを特徴とするポリペプチドである。
さらに、本発明は、前記の血管新生阻害作用を有するポリペプチドをコードする遺伝子である。
本発明において、「実質的に含む」とあるのは、本発明の遺伝子又はポリペプチドは、その機能を有する限り、配列番号1、3または5で表される塩基配列、あるいは配列番号2、4または6で表されるアミノ酸配列に置換、挿入又は欠失等の変異が生じてもよいことを意味する。
本発明のChM1L遺伝子配列は、RACE(RACE:Rapid amplification of cDNA ends;Frohman,M.A.et al,Proc.Natl.Acad.Sci.USA,85,8998−9002,1988)法により取得することができるが、その概要を述べれば次のとおりである。
一般的に、RACE法とは、cDNAの一部の配列が既知である場合、これをもとに完全長cDNAを効率よく取得する方法である。既知の配列領域から3’末端あるいは5’末端それぞれの方向に伸長できるようにプライマーを作製し、PCR(Polymerase Chain Reaction、Science,230,1350−1354,1985)法により、cDNAを増幅する。PCR法を実施する際は、既知領域では特異的にアニールするプライマー、3’末端及び5’末端ではライゲーション反応等により付加した配列にアニールするプライマーを用いる。従って、PCR法により増幅させた領域は配列が未知の領域を含んでいる。増幅させたDNA断片の単離・精製は後述の実施例でも述べるとおり常法に従うことができ、例えばゲル電気泳動等によればよい。このようにして得られたDNA断片等の塩基配列の決定も、常法に従うことができ、例えばジデオキシ法(Proc.Natl.Acad.Sci.USA,74,5463−5467,1977)やマキサム−ギルバート法(Methodsin Enzymology,65,499,1980)等により行うことができる。かかる塩基配列の決定は、市販のシークエンスキット等を用いても容易に行い得る。
より具体的には、本発明における後述の実施例2で詳細に述べるが、概略は以下の通りである。ヒトChM−Iのアミノ酸配列を用いて、日本DNAデータバンク(DDBJ:DNAdata bank of Japan)において、ESTデータベース(dbEST、EST:Expressed sequence tag)でTBLASTNサーチを実施し、ESTファイル、Genbankaccession number AI123839を検出した。AI123839は、dbESTに登録された塩基配列断片であるが、前記のTBLASTNサーチによりはじめてChM−Iに類似したアミノ酸配列をコードする新規遺伝子断片であることが明らかとなった。そこで、このdbESTより得たcDNAの一部の配列よりプライマーを合成し、RACE法を用いてヒトChM1L遺伝子の配列を決定するに至った。その後、同様にマウス及びラットChM1L遺伝子の配列を決定した。ヒト、マウス及びラットChM1L遺伝子の配列を配列番号1、3及び5に、それがコードするポリペプチドのアミノ酸配列を配列番号2,4及び6に示す。
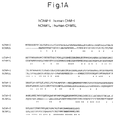
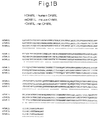
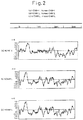
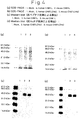
本発明のChM1L遺伝子がコードするポリペプチドは、317アミノ酸で構成される(配列番号2,4及び6)。ChM1Lのアミノ酸配列はChM−Iと相同性を有するが、特にChM−Iのプロセシングを受けて細胞外に分泌されるC末端部分と非常に高い相同性を有する(図1(a))。また、ChM1Lのアミノ酸配列はヒト、マウス及びラットの間で非常に高い相同性を有する(図1(b))。アミノ酸配列の疎水性度の解析から、ChM1LはChM−Iと同様にII型の膜タンパク構造を有する分子であると考えられる(図2)。図2に示すように、該ポリペプチド及びChM−Iは共に、膜結合性を有する分子に特徴的に認められる約20アミノ酸からなる疎水性のドメインが、N末端から数十アミノ酸付近に存在する。該ポリペプチドがII型の膜タンパク構造を有する分子であることは、該ポリペプチドをCOS7細胞に発現させた実施例8の結果からも明らかにされた(図4)。
本発明のヒトChM1L遺伝子は、後述の実施例12で述べるとおりヒトX染色体に存在することが明らかとなった(Genbankaccession No.ALO35608)。
本発明のChM1L遺伝子は、cDNA、化学的に合成されたDNA、PCRによって単離されたDNA、ゲノムDNA及びそれらの組み合わせがある。該ゲノムDNAは標準的な技法を用いて、本明細書中に開示されたChM1L遺伝子に対するハイブリッド形成によっても単離することができる。該ChM1L遺伝子から転写されたRNAもまた、本発明によって包含される。配列番号1、3及び5で示される本発明遺伝子の配列は、これによりコードされる各アミノ酸残基を示すコドンの一つの組み合わせ例であり、本発明のChM1L遺伝子はこれに限らず、各アミノ酸残基に対して任意のコドンを組み合わせ選択したDNA配列を有することも勿論可能である。該コドンの選択は常法に従うことができ、例えば利用する宿主のコドン使用頻度を考慮することができる(NucleicAcids Research,9,43−74,1981)。
さらに本発明のChM1L遺伝子には、配列番号2、4及び6で表されるアミノ酸配列の一部が置換、欠失、付加した変異体をコードするDNA配列もまた包含される。これらポリペプチドの製造、改変(変異)等は、天然に生じることもあり、また翻訳後の修飾により、或いは遺伝子工学的手法により、例えばサイトスペシフィック・ミュータジェネシス(Methodsin Enzymology,154,350,367−382,1987;同100,468,1983;NucleicAcids Research,12,9441,1984;続生化学実験講座1「遺伝子研究法II」,日本生化学会編,105,1986)等の方法により収得することができる。
本発明のChM1L遺伝子の製造は、本発明のChM1L遺伝子の配列情報に基づいて、一般的遺伝子工学的手法により容易に実施できる(MoleculerCloning 2nd ED,ColdSpring Harbor LaboratoryPress,1989;続生化学実験講座「遺伝子研究法I、II、III」、日本生化学会編,1986等参照)。
これは例えばcDNAライブラリー(ChM1L遺伝子の発現される適当な起源細胞より常法に従い調製されたもの)から、本発明遺伝子に特有の適当なプローブや抗体を用いて所望クローンを選択することにより実施できる(Proc.Natl.Acad.Sci.USA,78,6613,1981;Science,222,778,1983等)。
上記方法において、起源細胞としては、ChM1L遺伝子を発現する各種の細胞、組織やこれらに由来する培養細胞等が例示され、これらからの全RNAの分離、mRNAの分離や精製、cDNAへの変換(合成)とそのクローニング等はいずれも常法に従い実施できる。また、cDNAライブラリーは市販されてもおり、本発明ではそれらcDNAライブラリー、例えばクローンテック社より市販の各種cDNAライブラリー等を用いることもできる。
cDNAライブラリーからの本発明のChM1L遺伝子のスクリーニングは前記通常の方法に従い実施することが出来る。該スクリーニング方法としては、例えばcDNAの産生するポリペプチドに対して、本発明のChM1L遺伝子がコードするポリペプチドに対する特異的抗体を使用した免疫的スクリーニングにより対応するcDNAクローンを選択する方法、目的の塩基配列に選択的に結合するプローブを用いたプラークハイブリダイゼーション、コロニーハイブリダイゼーション等やこれらの組み合わせを例示できる。ここで用いられるプローブとしては、本発明のChM1L遺伝子のDNA配列に関する情報をもとにして化学合成されたDNA配列、既に取得された本発明のChM1L遺伝子やその断片がかかるプローブとして利用できる。
また、本発明のChM1L遺伝子の取得に際しては、PCR法によるDNA/RNA増幅法が好適に利用できる。かかるPCR法の採用に際して使用されるプライマーは、既に本発明によって明らかにされた本発明のChM1L遺伝子の配列情報に基づいて適宜設定することができ、これは常法に従い合成することができる。
より具体的には、実施例2で詳細に述べるが概略は以下のとおりである。ChM1L遺伝子のcodingsequenceを含むようにプライマーを合成し、これを用いてPCR法によりChM1L遺伝子を増幅する。その後、アガロース電気泳動を行い、目的のバンドを切り出した後、DNAを精製する。精製したDNAとプラスミドベクターをligation反応させ、大腸菌で形質転換を行う。その後、大腸菌培養液よりプラスミドを精製し、DNAシークエンサーにより目的の配列が組み込まれたことを確認する。このようにしてクローニングされたChM1L遺伝子は、適切な制限酵素を用いることにより、他のプラスミドベクターやウィルスベクターに移しかえることが可能である。
このようにして得られたChM1L遺伝子(cDNA及びゲノムDNA)を利用すれば、常法に従い、ChM1L遺伝子の発現が増加、減弱及び消失した遺伝子改変動物を作成することが可能である。
本発明のChM1L遺伝子の配列情報を基にすれば、該遺伝子の一部又は全部の塩基配列を利用することにより、各種組織における本発明のChM1L遺伝子の発現を検出することができる。これは常法に従って行うことができ、例えばRT−PCR(Reversetranscribed−polymerase chain reaction)(Kawasaki,E.S.,et al.,Amplificationof RNA.In PCR Protocol,A Guide to methods and applications,AcademicPress,Inc.,SanDiego,21−27,1989)法、ノーザンブロッティング解析(Molecular cloning,Cold Spring HarborLaboratory,1989)等により、いずれも良好に実施しうる。RT−PCR法のプライマー及びノーザンブロッティング解析のプローブは、ChM1L遺伝子を特異的に検出しうる配列である限り何ら制限はなく、かかる配列は本発明のChM1L遺伝子の塩基配列により適宜設定することが可能である。従って、本発明は、ChM1L遺伝子の検出に有用なプライマー及び/またはプローブを提供するものである。尚、該プローブは、サザンブロッティンング解析によるゲノムDNAの検出にも利用可能である。
ChM1L mRNAの発現を検出する手段としては、実施例6で述べるRT−PCR法を例示できる。詳細は実施例6で述べるが、概略は以下のとおりである。
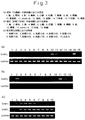
各組織を摘出してRNAを抽出した後、逆転写反応によりcDNAを合成する。このcDNAをテンプレートにしてPCR反応を行い、得られた反応液をアガロースゲルで電気泳動し、紫外線照射下でバンドを観察することにより、各組織でのChM1L遺伝子の発現量を検出した。その結果、成体マウスの各組織におけるChM1LmRNAの発現は、脳、眼球、骨格筋、whole rib及び甲状腺で認められた(図3(a))。一方、マウスにおけるChM−ImRNAの発現は、眼球、胸腺、軟骨及びwhole ribで確認されている(Shukunamiet al,Int.J.Dev.Biol 43,39−49,1999)。従って、ChM1LとChM−Iは生体内において異なる組織に発現していることが明らかとなり、その生理的な機能は異なると考えられた。ChM1Lは、ChM−Iでは発現が確認されていない組織である脳、骨格筋及び甲状腺で発現が認められた。
また、ChM−Iでも発現が認められている組織であり、血管侵入に対して抵抗性のある組織である眼球及び軟骨を含むwholeribで発現していることから、ChM1Lは血管新生に関与していると考えられる。これらの結果からChM1Lは、アルツハイマー病等の脳が関連した疾患、筋ジストロフィー等の骨格筋が関連した疾患、バセドウ病などの甲状腺が関連した疾患、糖尿病性網膜症等の眼球が関連した疾患、変形性関節症やリウマチ性疾患などの軟骨組織が関連した疾患及び癌を含む血管新生が関連した疾患に関与していると考えられる。従って、本発明のChM1L遺伝子、ChM1Lポリペプチド、ChM1Lに結合する抗体を含むChM1Lに対するアンタゴニスト及びアゴニスト、ChM1L遺伝子の発現を促進あるいは減弱させる物質等をこれらの疾患の治療薬として適用することができると考えられる。尚、ここで挙げたアゴニストやアンタゴニストなどの物質は、ペプチド、タンパク質及び低分子化合物などが考えられ、その機能を有する限り物質の性状に制限はないものとする。
胎児の各組織においてChM1L mRNAの発現は、眼球、腎臓、胃、wholerib及び気管で認められた(図3(b))。成体マウスでは、腎臓及び胃でのChM1L mRNAの発現は認められていないが、胎児においてこれらの組織にChM1L mRNAが発現していることは、これらの臓器の発生・形態形成にChM1Lが関与していることを示しているものと考えられる。従って、ChM1Lは、成体においてもこれらの臓器の修復や再生にも関与していると考えられる。また、気管においてもChM1LmRNAが発現していることが明らかとなった。従って、本発明のChM1L遺伝子、ChM1Lポリペプチド、ChM1Lに結合する抗体を含むChM1Lに対するアンタゴニスト及びアゴニスト、ChM1L遺伝子の発現を促進あるいは減弱させる物質等を、慢性腎不全等の腎臓が関連した疾患、胃がんや胃潰瘍などの胃が関連した疾患及び慢性気管支炎や喘息などの気管が関連した呼吸器系疾患に対する治療薬として適用することができると考えられる。
胎児発生段階においてChM1L mRNAの発現は、妊娠10日目では非常に弱く、11日目から13日目にかけて発現が上昇している(図3(c))。一方、ChM−IもChM1Lと同様に胎児の発生に伴って発現が上昇するが、妊娠10日目及び11日目では明らかにChM1Lよりも強い発現を示した。従って、胎児発生段階において、ChM1LはChM−Iよりも遅れて発現が上昇することが明らかとなり、両分子が胎児発生において異なる機能を有することが明らかとなった。また、胎児発生段階においてChM1Lの発現が上昇することは、ChM1Lが臓器や骨格の形成に深く関与していることを示している。従って、本発明のChM1L遺伝子、ChM1Lポリペプチド、ChM1Lに結合する抗体を含むChM1Lに対するアンタゴニスト及びアゴニスト、ChM1L遺伝子の発現を促進あるいは減弱させる物質等は、臓器の不十分な発達による先天性疾患や後天的に臓器が損傷した場合に、臓器を再生及び修復させる薬剤として適用できるものと考えられる。また、ChM1LとChM−Iでは成体及び胎児の各組織における発現、胎児発生段階における発現に違いが認められることから、これらの分子及びこれらの分子をターゲットにした薬剤を各種疾患の治療薬として適用する場合には、その用途は異なる場合があると考えられる。
本発明のChM1L遺伝子の配列を使用すれば、遺伝子工学的手法により該遺伝子がコードするポリペプチドを製造することが可能である。
該ポリペプチドの製造は、本発明のChM1L遺伝子が宿主細胞中で発現できる組換え体DNAを作製し、これを宿主細胞に導入して形質転換し、該形質転換体を培養することにより行われる。ここで宿主細胞としては、真核性宿主細胞及び原核性宿主細胞のいずれを用いることもできる。
該真核性宿主細胞には、脊椎動物、酵母及び昆虫細胞等が含まれる。脊椎動物細胞としては、例えばCHO細胞及びCOS細胞等が挙げられる。
脊椎動物の発現ベクターとしては、通常発現しようとする遺伝子の上流に位置するプロモーター、ポリアデニル化部位及び転写終了配列等を保有するものを使用できる。該発現ベクターとしては例えば、SV40の初期プロモーターを保有するpSV2dhfr(Mol.Cell.Biol.,854,1981)、pcDNA3.1(+)(Invitrogen社)及びpCAGGS(Gene,108,193−200,1991)等を例示できる。
真核細胞中で目的ポリペプチドを発現させる手段は、それ自体当該分野では多くの系が周知である。
例えば酵母中で発現させる系としては特開昭57−159489号公報に記載された「酵母中でのポリペプチドの発現」が挙げられ、昆虫細胞中で発現させる系としては特開昭60−37988号公報に記載された「組換えバキュロウイルス発現ベクターの製法」が挙げられ、哺乳類動物細胞中で発現させる系としては特開平2−171198号公報に記載された「真核性発現の改良」が挙げられるが、もちろんこれら以外にも多数存在する。
本発明ChM1L遺伝子は、例えば、大腸菌、枯草菌およびストレプトマイセス等の原核性宿主細胞内でも発現し得る。例えば、上記宿主としての大腸菌はEcherichiacoli K12株等がよく用いられ、ベクターとしてはpBR322及びその改良ベクターがよく用いられるが、これらに限定されず公知の各種菌株及びベクターも利用できる。プロモーターとしては、例えば、大腸菌ラクトース(lac)、大腸菌trp等のプロモーターが挙げられるがこれらに限定されない。また、上記のプロモーターは、いずれも既に特性化されており、当業者が熟知しているものであって、合成的にあるいは、既知のプラスミドから組み立てることができるものである。
本発明の例示DNA配列、プラスミドおよびウイルスには多くの修飾や変更が可能である。例えば、遺伝暗号の同義性により、ポリペプチドの暗号領域全体を通して、ヌクレオチドの置換を行うことができる。そのような配列は、本発明ChM1L遺伝子の塩基配列又はそれがコードするポリペプチドのアミノ酸配列から推定することができ、下記の従来からの合成法により組み立てることができる。そのような合成法は、実質上、イタクラらの方法(Itakuraet al,Science 198,1059,1977)ならびにクレアらの方法(Creaet al,Proc.Natl.Acad.Sci.USA 75,5765,1978)に従って行うことができる。従って、本発明は特に例示した塩基配列、プラスミドおよびウイルスに限定されるものではない。
かくして得られる所望の本発明の組換え体DNAの宿主細胞への導入方法及びこれによる形質転換方法としては、一般的な各種方法を採用できる。また、得られる形質転換体は常法に従い培養でき、該培養により本発明のChM1L遺伝子がコードするポリペプチドが生産される。該培養に用いられる培地としては、採用した宿主細胞に応じて慣用される各種のものを適宜選択でき、その培養も宿主細胞の成育に適した条件下で実施できる。
上記により、形質転換体の細胞内、細胞外あるいは細胞膜上に該ポリペプチドが生産される。該ポリペプチドは、所望によりその物理学的性質、化学的性質等を利用した各種の分離操作[「生化学データブックII」、1175−1259頁、第1版第1刷、1980年6月23日株式会社東京化学同人発行;Biochemistry,25(25),8274−8277(1986);Eur.J.Biochem.,163,313−321(1987)等参照]により分離、精製できる。該方法としては、具体的には例えば通常の再構成処理、ポリペプチド沈澱剤による処理(塩析法)、遠心分離、浸透圧ショック法、超音波破砕、限外ろ過、ゲルろ過、吸着クロマトグラフィー、イオン交換クロマトグラフィー、アフィニティークロマトグラフィー、高速液体クロマトグラフィー(HPLC)等の各種液体クロマトグラフィー、透析法、これらの組合わせ等を例示できる。また、該ポリペプチドにアフィニティータグを融合したタンパク質を発現させれば、このタグを利用してアフィニティー精製を実施することが可能である。ここで述べるアフィニティータグとは例えば、ポリヒスチジンタグ(Hisタグ、Sisket al,J.Virol.68,766,1994)及びFLAGタグ(Hopp et al,Biotechnology 6,1204−1210,1988)が挙げられる。これらのアフィニティータグを融合したChM1Lポリペプチドの発現及び検出は、実施例8及び9で述べるように実施することが可能であり、これらのタグを用いてChM1Lポリペプチドを精製することも実施し得る。
本発明のChM1L遺伝子がコードするポリペプチドの製造方法は、より具体的には実施例8で詳細に述べるが概略は以下のとおりである。
本発明のヒト及びマウスChM1L遺伝子及びC末端にHisタグが融合したChM1Lタンパク質をコードする遺伝子をpcDNA3.1(+)ベクターにクローニングし(実施例4)、これをCOS7細胞にトランスフェクトした。約48時間後に、培養上清及び細胞成分を回収してWesternblot法によりChM1Lリコンビナントタンパク質の検出を試みた。しかし、培養上清及び細胞成分のいずれにおいてもChM1Lタンパク質の発現を検出することはできなかった。
そこで、ChM1Lリコンビナントタンパク質の発現を検出する条件を検討したところ、発現ベクターにpCAGGSを使用することによりCOS7細胞での該ポリペプチドの発現を検出することが可能となった。本発明のヒト及びマウスChM1L遺伝子及びC末端にHisタグが融合したChM1Lタンパク質をコードする遺伝子をpCAGGSベクターにクローニングし(実施例4)、これをCOS7細胞にトランスフェクトした。約48時間後に、培養上清及び細胞成分を回収してWesternblot法によりChM1Lリコンビナントタンパク質を検出した。培養上清ではChM1Lタンパク質の発現は確認されず、細胞成分では40kDa付近に2本のバンドが検出された。
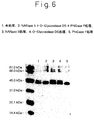
従って、ChM1Lタンパク質は膜結合性タンパク質であることが明らかになった。一方、ChM−IをCOS7細胞で発現させると培養上清中に可溶性のタンパク質として分泌されることが確認されている(Hirakiet al,J.Biol.Chem.,272,32419−32426,1997)。従って、COS7細胞による解析からChM1LとChM−Iは異なる構造を有するタンパク質であることが明らかとなった。すなわち、ChM1Lは細胞膜結合型のタンパク質であり、ChM−Iは分泌性のタンパク質であり、両分子のプロセシングの機構が異なることが明らかとなった。尚、ChM1Lタンパク質の2本のバンドのうち、高分子量側のバンドは、N結合型の糖鎖により修飾されたフォームであることが、後述する実施例10により明らかになった(図6)。
このようにして発現させたChM1Lタンパク質は、ChM1L特異的抗体あるいはヒスチジンが6残基融合したタグ(Hisタグ)などに対する抗体及びニッケルカラムなどを用いてアフィニティー精製することが可能である。
本発明のChM1L遺伝子がコードするポリペプチドは、膜結合性ポリペプチド及び細胞膜結合性を有しない可溶性のポリペプチドでもあり得る。例えば、細胞膜上に膜結合性ポリペプチドとして発現した後、切断されて可溶性になる場合等が考えられる。COS7細胞における発現ではChM1Lタンパク質は膜結合型のタンパク質として検出されたが(実施例8)、宿主細胞や培養条件などが異なればプロセシングを受けて可溶性タンパク質となることもありうる。また、膜貫通領域を欠く可溶性の該ポリペプチドは、異種シグナルペプチドをN末端に融合することにより発現させることができる。
より具体的には、実施例9で詳細に述べるが可溶性のChM1Lタンパク質を発現させる方法の概略は以下のとおりである。
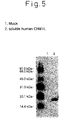
pCAGGSベクターにN末側から、プレプロトリプシンのシグナルシークエンス、FLAGタグ、ChM1Lの細胞外領域のC末端側が融合したタンパク質コードする塩基配列を組み込んだベクターを構築した(実施例5)。このベクターを用いて発現させたChM1Lタンパク質は、プレプロトリプシンのシグナルシークエンスが切断を受けた後、可溶性タンパク質として培養液中に分泌された(実施例9、図5)。
このようにして培養液中に分泌された可溶性のChM1Lポリペプチドは、抗ChM1L抗体あるいは、FLAGタグが融合しているため抗FLAG抗体(Sigma社)を用いて精製することが可能である。また、FLAG融合タンパク質をエンテロキナーゼで切断することにより、FLAGタグを除去することも可能である。
より具体的には、実施例13で詳細に述べるが可溶性ChM1Lタンパク質の精製方法の概略は以下のとおりである。
リポフェクトアミン試薬(GIBCO BRL社)を用いて製品説明書に従って、pSF−shChM1LをCOS7細胞にトランスフェクトして約48時間後に培養上清を回収した。この培養上清から、抗FLAGM2アフィニティーゲル(Sigma社)を用いたアフィニティークロマトグラフィーにより、可溶性ヒトChM1Lタンパク質を精製した(図8)。
本発明のChM1Lポリペプチドは、ポリペプチド精製試薬として用いることができる。固体支持材料に結合した該ポリペプチドは、アフィニティークロマトグラフィーによる該ポリペプチドに結合し得るポリペプチドの精製に有用である。ChM1Lポリペプチドに結合し得るポリペプチドとしては、可溶性ポリペプチド、膜結合性ポリペプチド及び抗体などが考えられる。可溶性のChM1Lポリペプチドは、invitroでは細胞培養液中への添加、in vivoでは静脈内投与などに容易に適用し得る。
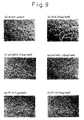
本発明ChM1Lポリペプチドの活性を検索する目的で、ヒト臍帯静脈内皮細胞(HumanUmbilical Vein EndothelialCells:HUVECs)を用いて血管新生阻害作用の有無を解析した。詳細は、後述の実施例14で述べるが概略は以下のとおりである。HUVECsをマトリゲル(BECTONDICKINSON)でコートしたプレート上で培養すると、血管内皮細胞が管腔様の構造を形成する(図9)。この培養液中に、前述のアフィニティークロマトグラフィーにより精製したChM1Lポリペプチドを加えるとHUVECsの管腔様構造の形成が阻害された(図9)。従って、ChM1Lは血管新生阻害作用を有することが明らかとなり、可溶性のChM1Lポリペプチドは糖尿病性網膜症、癌、慢性関節リウマチなどの血管新生を伴う疾患の治療薬として適用できることが明らかとなった。
本発明のChM1L遺伝子がコードするポリペプチドは、これを用いて特異抗体を作製することもできる。ここで使用される抗原は、上記遺伝子工学的手法に従って大量に産生されるポリペプチド又は化学的に合成されたポリペプチドがあり、得られる抗体はポリクローナル抗体及びモノクローナル抗体のいずれでもよく、これらの抗体は該ポリペプチドの精製、測定、識別等に有効に利用できる。従って、該ポリペプチドに対するポリクローナル抗体及びモノクローナル抗体は該ポリペプチドによって(直接的に又は間接的に)媒介される疾患の治療及び治療法の開発に使用することができ、上記疾患の診断用試薬として使用することも可能である。
本発明のChM1L遺伝子がコードするポリペプチドに特異的に結合する抗体は、実施例7に示すように作製することができる。作製した抗ChM1Lポリペプチド抗体が該ポリペプチドと特異的に結合することは、実施例8のWesternblotの結果により確かめられた(図4)。
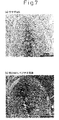
抗ChM1Lポリペプチド抗体は、実施例11に示したように組織切片の免疫染色にも使用可能である。肋軟骨組織を抗ChM1Lポリペプチド抗体を用いて染色すると、軟骨組織周囲を取り囲むようにして存在する線維芽細胞様の扁平な形態を示す細胞が特異的に染色された(図7)。一方、ChM−Iは軟骨細胞に特異的に発現しており、免疫染色によっても軟骨細胞及び軟骨細胞外のマトリックスに蓄積されていることが明らかにされている(Hirakiet al,J.Biol.Chem,,272,32419−32426,1997)。従って、ChM1LとChM−Iは軟骨を含む組織において異なる細胞に発現していることが明らかとなった。従って、ChM1LはChM−Iと異なる機能を有する分子であることが明らかとなった。
免疫染色によってChM1Lタンパク質を発現していることが明らかになった線維芽細胞様の形態を示す細胞群を含む組織は、従来より軟骨膜(perichondrium)と呼ばれている(Sudaet al,骨形成と骨吸収及びそれらの調節因子1、2,1995)。軟骨膜という組織に関しては現在のところ明確な定義はないが、本明細書中では軟骨細胞周囲を取り囲む線維芽細胞様の形態を示す細胞を含む組織のことを指すものとする。
軟骨膜に存在する細胞は、内軟骨性骨化の過程で軟骨組織が成長する際の軟骨細胞の供給源であると考えられている。従って、軟骨膜は発生過程における骨格形成や成体における骨、軟骨の損傷時に軟骨細胞を供給する重要な組織である。また、軟骨組織には血管、神経、リンパ管が存在しないことが特徴であるが、軟骨組織と他の組織の境界に存在するのが軟骨膜であることから、軟骨膜は軟骨細胞への血管、神経、リンパ管の侵入を制御していると考えられる。このように、軟骨膜は重要な組織であることが認識されているが、上述のように明確に定義された組織ではなく、現在のところ詳細な研究は行われていない。その理由としては、軟骨膜特異的に発現する分子が全く明らかにされていないことが挙げられる。
従って、軟骨組織周囲を取り囲む軟骨膜と呼ばれる組織に特異的に発現する分子の存在が明らかになれば、軟骨膜及び軟骨組織の研究に非常に重要なツールとして利用できる。
本発明のChM1Lは、軟骨膜特異的に発現していることが明らかにされた唯一の分子であり、血管、神経、リンパ管の軟骨組織への侵入を制御していると考えられる。
従って、ChM1L遺伝子の発見と本発明に含まれるChM1Lの機能解析の結果は、今後、軟骨膜及び軟骨組織を含むChM1Lが発現しているその他の組織が関与する疾患の原因や治療法の開発に新たな視点を与えうるものであると考えられる。
従って、本発明のChM1L遺伝子、ChM1Lポリペプチド、ChM1Lに結合する抗体を含むChM1Lに対するアンタゴニスト及びアゴニスト、ChM1L遺伝子の発現を促進あるいは減弱させる物質等は、上記のChM1Lを発現している細胞が関与している疾患の治療薬として適用することができると考えられる。
本発明のChM1L遺伝子及びそれがコードするポリペプチドは、上記のmRNAの発現解析及び免疫染色の結果から、脳、眼球、骨格筋、甲状腺、軟骨を含むwholerib、腎臓、胃、気管及び軟骨組織周囲を取り囲むようにして存在する線維芽細胞様の扁平な形態を示す細胞に発現していることが明らかとなった。従って、本発明のChM1L遺伝子及びそれがコードするポリペプチドは、それが発現していることが確認された上記の組織が関連する疾患、例えば糖尿病性網膜症、筋ジストロフィー、バセドウ病、慢性腎不全、胃癌、慢性気管支炎、変形性関節症及びリウマチ性疾患などに関与していると考えられる。
従って、本発明のChM1L遺伝子、ChM1Lポリペプチド、ChM1Lに結合する抗体を含むChM1Lに対するアンタゴニスト及びアゴニスト、ChM1L遺伝子の発現を促進あるいは減弱させる物質等はこれらの疾患に対する治療薬として適用することができると考えられる。
以下、実施例により本発明をさらに具体的に説明するが、これらの実施例は本発明の範囲を限定するためのものでない。
実施例1.ChM1Lアミノ酸配列の解析
ChM−IとChM1Lのアミノ酸配列の相同性を比較した(図1(a))。尚、アミノ酸配列はアルファベット1文字で表示した。ChM1Lは、分子全体を通してChM−Iと相同性を有するが、ChM−Iのプロセシングを受けて細胞外に分泌されるC末側と特に高い相同性を有することが明らかになった。
ChM−IとChM1Lのアミノ酸配列の相同性を比較した(図1(a))。尚、アミノ酸配列はアルファベット1文字で表示した。ChM1Lは、分子全体を通してChM−Iと相同性を有するが、ChM−Iのプロセシングを受けて細胞外に分泌されるC末側と特に高い相同性を有することが明らかになった。
ヒト、マウス及びラットChM1Lのアミノ酸配列の相同性を比較した(図1(b))。ChM1Lポリペプチドは、ヒト、マウス及びラットともに、317アミノ酸で構成されるが、3種間で300アミノ酸残基が同一であった(約95%)。
ChM−IとChM1Lの疎水性度の図を示す(図2)。ChM−I及びChM1L共にN末側に疎水性の大きなピークが認められる。この疎水性の領域は、細胞膜結合型のタンパク質に特徴的に認められるものであり、ChM1LはChM−Iと同様にII型の膜結合性タンパク質であることが示された。
実施例2.ChM1L遺伝子のクローニング
日本DNAデータバンク(DDBJ:DNA data bank of Japan)から、ヒトChM−Iのアミノ酸配列(Genbank accession number M16441)を用いて、Expressed sequence tagデータベース(dbEST)上でTBLASTNサーチを実施した。その結果、ChM−Iと相同性を有する新規遺伝子断片として、ESTファイル、Genbank accession number AI123839を検出した。
日本DNAデータバンク(DDBJ:DNA data bank of Japan)から、ヒトChM−Iのアミノ酸配列(Genbank accession number M16441)を用いて、Expressed sequence tagデータベース(dbEST)上でTBLASTNサーチを実施した。その結果、ChM−Iと相同性を有する新規遺伝子断片として、ESTファイル、Genbank accession number AI123839を検出した。
クローンテック社製Human fetus Marathon−ReadyTM cDNAを用いて製品説明書に従い、RACE法によりcDNAの増幅を行った。プライマーは上記のdbESTより得られた塩基配列より合成し、ExTaq plymerase(宝酒造)を製品説明書に従って使用し、GeneAmp登録商標 PCR System 9700(PE Applied Biosystems社)を用いて、反応サイクルは96℃ 30秒、60℃ 30秒、72℃ 1分を30回繰り返すこととし、最後に72℃で6分間インキュベートしてPCR反応液を得た。この反応液をテンプレートとして1/10量加え、同条件で2度目のPCR行った。
得られたPCR産物をエチジウムブロマイド入りの1%アガロースゲルで電気泳動を行い、このゲルを紫外線下で観察することによりDNAバンドを調べた。増幅されたフラグメントをゲルから切り取り、製品説明書に従い、QIAquick Gel Extraction Kit(QIAGEN社)を用いて精製した。
精製フラグメントの塩基配列は製品説明書に従い、PE Applied Blosystems社製DNAシークエンサー(ABI PRISMTM 310 Genetic Analyzer)及びABI PRISMTM BigDye Terminator Cycle Sequencing Ready Reaction kitを用いて決定した。
ヒトChM1L cDNAの核酸塩基配列を配列番号1に、アミノ酸配列を配列番号2を示す。
配列番号1で表されるヒトChM1L遺伝子によりコードされるアミノ酸配列が、ヒトChM−Iと相同性を示すことから、この遺伝子をChM1L遺伝子(ChM−Ilike gene)と呼ぶこととした。
ヒトChM1L cDNAのcoding sequence(CDS)をPCRにより増幅、アガロース電気泳動後、精製し、pCR−ScriptTM Ampクローニングキット(Stratagene社)を用いて製品説明書に従ってクローニングした。PCRに用いたプライマーの配列を配列番号7(Forward primer)及び配列番号8(Reverse primer)に示した。ベクターに組み込まれたChM1L遺伝子配列は製品説明書に従い、ABI PRISMTM 310 Genetic Analyzer(PE Applied Biosystems社)及びABI PRISMTM BigDye Terminator Cycle Sequencing Ready Reaction kitを用いて決定した。
ヒトChM1Lのアミノ酸配列(配列番号2)を用いて、上記ヒトの場合と同様にTBLASTNサーチを実施した。その結果、マウスChM1Lをコードする遺伝子断片としてESTファイル、Genbank accession number AV009191、ラットChM1Lをコードする遺伝子断片としてESTファイル、Genbank accession number AI112003が検出された。クローンテック社製Mouse11−day Embryo Marathon−ReadyTM cDNA及びRat Skeletal muscle Marathon−ReadyTM cDNAを用いてヒトChM1L遺伝子の単離と同様にRACE法によりマウス及びラットChM1L遺伝子配列を決定した。
マウスChM1L cDNAの核酸塩基配列を配列番号3に、アミノ酸配列を配列番号4に示す。ラットChM1LcDNAの核酸塩基配列を配列番号5に、アミノ酸配列を配列番号6に示す。
マウス及びラットChM1L cDNAのcoding sequence(CDS)をPCRにより増幅、アガロース電気泳動後、精製し、pCR−ScriptTM Ampクローニングキット(Stratagene社)を用いて製品説明書に従ってクローニングした。マウス遺伝子のPCRに用いたプライマーの配列を配列番号9(Forward primer)及び配列番号10(Reverse primer)に、ラット遺伝子のPCRに使用したプライマーの配列を配列番号11(Forward primer)及び配列番号12(Reverse primer)に示した。ベクターに組み込まれたChM1L遺伝子配列は製品説明書に従い、ABI PRISMTM 310 Genetic Analyzer(PE Applied Biosystems社)及びABI PRISMTM BigDye Terminator Cycle Sequencing Ready Reaction kitを用いて決定した。
本実施例で作製した、ヒト、マウス及びラットChM1L遺伝子を組み込んだベクターは、以下の略称を用いることとする。
・ヒトChM1L遺伝子を含むベクター:pCR−hChM1L
・マウスChM1L遺伝子を含むベクター:pCR−mChM1L
・ラットChM1L遺伝子を含むベクター:pCR−rChM1L
・ヒトChM1L遺伝子を含むベクター:pCR−hChM1L
・マウスChM1L遺伝子を含むベクター:pCR−mChM1L
・ラットChM1L遺伝子を含むベクター:pCR−rChM1L
実施例3.C末端にヒスチジン6残基が融合したヒト及びマウスChM1Lタンパク質をコードする遺伝子を含むベクターの構築
ヒト及びマウスChM1L cDNAのcoding sequence(CDS)をPCRにより増幅、アガロース電気泳動後、精製し、C末端にヒスチジン6残基(Hisタグ)が融合するように改良したpCR−Script SK(+)ベクター(Stratagene社)及びpCR−ScriptTM Ampクローニングキット(Stratagene社)を用いて製品説明書に従ってクローニングした。ヒト遺伝子のPCRに用いたプライマーの配列を配列番号7(Forward primer)及び配列番号13(Reverse primer)に、マウス遺伝子のPCRに使用したプライマーの配列を配列番号9(Forward primer)及び配列番号14(Reverse primer)に示した。ChM1LのC末端にHisタグが融合したタンパク質をコードする塩基配列が組み込まれていることは、ABI PRISMTM 310 Genetic Analyzer(PE Applied Biosystems社)及びABI PRISMTM BigDye Terminator Cycle Sequencing Ready Reaction kitを製品説明書に従って使用し確認した。C末端にHisタグが融合したヒト及びマウスChM1Lのアミノ酸配列を配列番号17及び18に、それをコードする核酸塩基配列を配列番号15及び16に示した。
ヒト及びマウスChM1L cDNAのcoding sequence(CDS)をPCRにより増幅、アガロース電気泳動後、精製し、C末端にヒスチジン6残基(Hisタグ)が融合するように改良したpCR−Script SK(+)ベクター(Stratagene社)及びpCR−ScriptTM Ampクローニングキット(Stratagene社)を用いて製品説明書に従ってクローニングした。ヒト遺伝子のPCRに用いたプライマーの配列を配列番号7(Forward primer)及び配列番号13(Reverse primer)に、マウス遺伝子のPCRに使用したプライマーの配列を配列番号9(Forward primer)及び配列番号14(Reverse primer)に示した。ChM1LのC末端にHisタグが融合したタンパク質をコードする塩基配列が組み込まれていることは、ABI PRISMTM 310 Genetic Analyzer(PE Applied Biosystems社)及びABI PRISMTM BigDye Terminator Cycle Sequencing Ready Reaction kitを製品説明書に従って使用し確認した。C末端にHisタグが融合したヒト及びマウスChM1Lのアミノ酸配列を配列番号17及び18に、それをコードする核酸塩基配列を配列番号15及び16に示した。
本実施例で作製したHisタグが融合したChM1Lタンパク質をコードする遺伝子をクローニングしたベクターは、以下の略称を用いることとする。
・ヒトChM1LとHisタグが融合したタンパク質をコードする遺伝子を含むベクター:pCR−hChM1LHis
・マウスChM1LとHisタグが融合したタンパク質をコードする遺伝子を含むベクター:pCR−mChM1LHis
・ヒトChM1LとHisタグが融合したタンパク質をコードする遺伝子を含むベクター:pCR−hChM1LHis
・マウスChM1LとHisタグが融合したタンパク質をコードする遺伝子を含むベクター:pCR−mChM1LHis
実施例4.発現ベクターの構築
哺乳動物細胞でChM1L遺伝子を発現させることを目的として、pcDNA3.1(+)ベクター(Invitrogen社)及びpCAGGSベクター(Gene,108,193−200,1991)に、前記のpCR−hChM1L、pCR−mChM1L、pCR−hChM1LHis及びpCR−mChM1LHisベクターからCDSを制限酵素EcoRI及びNotIで切り出し、アガロース電気泳動後、目的のバンドを精製し、Ligationhigh(東洋紡)を製品説明書に従って使用してライゲーション反応を行った。ライゲーション反応後の溶液を、E.coli JM109 Competent cell(宝酒造)を用いて製品説明書に従ってトランスフォーメーションを行った。プラスミドを精製後、目的の遺伝子が組み込まれていることは制限酵素反応とアガロース電気泳動により確認した。
哺乳動物細胞でChM1L遺伝子を発現させることを目的として、pcDNA3.1(+)ベクター(Invitrogen社)及びpCAGGSベクター(Gene,108,193−200,1991)に、前記のpCR−hChM1L、pCR−mChM1L、pCR−hChM1LHis及びpCR−mChM1LHisベクターからCDSを制限酵素EcoRI及びNotIで切り出し、アガロース電気泳動後、目的のバンドを精製し、Ligationhigh(東洋紡)を製品説明書に従って使用してライゲーション反応を行った。ライゲーション反応後の溶液を、E.coli JM109 Competent cell(宝酒造)を用いて製品説明書に従ってトランスフォーメーションを行った。プラスミドを精製後、目的の遺伝子が組み込まれていることは制限酵素反応とアガロース電気泳動により確認した。
本実施例で作製したベクターは、以下の略称を用いることとする。
・hChM1L、mChM1L、hChM1LHis及びmChM1L遺伝子を含むpcDNA3.1(+)ベクター:
pcDNA−hChM1L、pcDNA−mChM1L、pcDNA−hChM1LHis及びpcDNA−mChM1LHis
・hChM1L、mChM1L、hChM1LHis及びmChM1L遺伝子を含むpCAGGSベクター:
pCAGGS−hChM1L、pCAGGS−mChM1L、pCAGGS−hChM1LHis及びpCAGGS−mChM1LHis
・hChM1L、mChM1L、hChM1LHis及びmChM1L遺伝子を含むpcDNA3.1(+)ベクター:
pcDNA−hChM1L、pcDNA−mChM1L、pcDNA−hChM1LHis及びpcDNA−mChM1LHis
・hChM1L、mChM1L、hChM1LHis及びmChM1L遺伝子を含むpCAGGSベクター:
pCAGGS−hChM1L、pCAGGS−mChM1L、pCAGGS−hChM1LHis及びpCAGGS−mChM1LHis
実施例5.FLAGタグが融合したヒト可溶性ChM1Lタンパク質を発現するベクターの構築
本実施例で述べるFLAGタグ(Sigma社)とは、8アミノ酸からなる親水性のマーカーペプチド(Asp Tyr Lys AspAsp Asp AspLys)であり、最後の5アミノ酸(Asp Asp Asp Asp Lys)は、エンテロキナーゼの認識配列となっている。本実施例によって作製されたベクターは、N末側から、プレプロトリプシンのシグナルシークエンス、FLAGタグ、ChM1Lの細胞外領域のC末端側が融合したタンパク質を発現させることが可能である。このベクターを用いて発現させたタンパク質は、後述する実施例9で詳述するように、プレプロトリプシンのシグナルシークエンスが切断を受けた後、可溶性タンパク質として培養液中に分泌される。また、このベクターにより発現されたタンパク質は、FLAGタグが融合しているため、抗FLAG抗体(Sigma社)を用いて精製することが可能であり、融合タンパク質をエンテロキナーゼで切断することにより、FLAGタグを除去することも可能である。
本実施例で述べるFLAGタグ(Sigma社)とは、8アミノ酸からなる親水性のマーカーペプチド(Asp Tyr Lys AspAsp Asp AspLys)であり、最後の5アミノ酸(Asp Asp Asp Asp Lys)は、エンテロキナーゼの認識配列となっている。本実施例によって作製されたベクターは、N末側から、プレプロトリプシンのシグナルシークエンス、FLAGタグ、ChM1Lの細胞外領域のC末端側が融合したタンパク質を発現させることが可能である。このベクターを用いて発現させたタンパク質は、後述する実施例9で詳述するように、プレプロトリプシンのシグナルシークエンスが切断を受けた後、可溶性タンパク質として培養液中に分泌される。また、このベクターにより発現されたタンパク質は、FLAGタグが融合しているため、抗FLAG抗体(Sigma社)を用いて精製することが可能であり、融合タンパク質をエンテロキナーゼで切断することにより、FLAGタグを除去することも可能である。
pCAGGSベクターに、N末端からプレプロトリプシンのシグナルシークエンスとFLAGタグ(配列番号20)をコードする塩基配列(配列番号19、Sigma社製pFLAG−CMV−1ベクターに含まれる)を組み込んだベクターを構築した(以下、pSFベクターとする)。pSFベクターに配列番号2で表されるヒトChM1Lのアミノ酸番号212から317及び翻訳停止コドンを含む領域をコードする塩基配列(配列番号1の塩基配列番号684から1020)をPCR法により増幅し、この増幅産物をpSFベクターのFLAGタグをコードする塩基配列の3’側に組み込んだ。PCRに用いたプライマーの配列を配列番号21(Forward primer)及び配列番号8(Reverse primer)に示した。構築したベクターに目的とする塩基配列が組み込まれていることは、ABI PRISMTM 310 Genetic Analyzer(PE Applied Biosystems社)及びABI PRISMTM BigDye Terminator Cycle Sequencing Ready Reaction kitを製品説明書に従って使用し確認した。本実施例で、ベクターに組み込んだ核酸塩基配列を配列番号22に、それがコードするアミノ酸配列を配列番号23に示した。本実施例で作製したベクターは、pSF−shChM1Lという略称を用いることとする。
実施例6.ChM1L mRNAの発現解析
成体(10週齢)の各組織におけるChM1L mRNAの発現解析:図3(a)
10週齢のC57BL/6マウスを解剖して各組織を取り出し、直ちに液体窒素で凍結した。凍結した組織を細かく砕き、ISOGEN(ニッポンジーン社)を製品説明書に従って使用して、各組織のtotalRNAを得た。得られた各組織のtotal RNA 1ugをテンプレートとして、Superscript II preamprefication kit(GIBCO BRL社)を製品説明書に従って使用して、cDNA20uLを合成した。RT−PCRは反応系の総液量を50uLとし、各組織のcDNA 0.5uL、ExTaq polymerase(宝酒造)を0.25uL使用して、Forward primer(配列番号9)及びreverse primer(配列番号10)をそれぞれ0.2uMとなるように加えて、GeneAmp登録商標PCR System 9700(PEApplied Biosystems社)を用い、96℃30秒、60℃ 30秒、72℃ 1分で30サイクル増幅させた。得られた反応液をエチジウムブロマイド入りの1%アガロースゲルで電気泳動し、ゲルを紫外線照射下で撮影して、各組織におけるChM1LmRNAの発現を検討した。
図3(a)に示したように、成体マウスの各組織におけるChM1L mRNAの発現は、脳、眼球、骨格筋、whole rib及び甲状腺で認められた。マウスにおけるChM−Iの発現は、眼球、胸腺、軟骨及びwholeribで確認されている。従って、ChM1LとChM−Iは、生体内において異なる組織に発現していることが明らかとなり、その生理的な機能は異なることが示唆された。
胎児(妊娠17日目)の各組織におけるChM1L mRNAの発現解析:図3(b)
C57BL/6マウスの妊娠17日目の胎児を帝王切開により取り出し、各組織を取り出し直ちに液体窒素で凍結した。凍結した組織からのtotalRNAの抽出、cDNAの合成、RT−PCRの実施は上述の<成体マウスの各組織におけるChM1L mRNAの発現解析>と同様に実施した。
C57BL/6マウスの妊娠17日目の胎児を帝王切開により取り出し、各組織を取り出し直ちに液体窒素で凍結した。凍結した組織からのtotalRNAの抽出、cDNAの合成、RT−PCRの実施は上述の<成体マウスの各組織におけるChM1L mRNAの発現解析>と同様に実施した。
図3(b)に示すように、胎児の各組織におけるChM1L mRNAの発現は、眼球、腎臓、胃、whole rib及び気管で認められた。胎児マウスにおいては、成体マウスでは発現が認められなかった腎臓及び胃で発現が認められた。従って、ChM1Lはこれらの臓器の発生・形態形成に関与している可能性があり、臓器修復や再生にも関与すると考えられる。また、気管においてもChM1LmRNAが発現がしていることが明らかとなった。
胎児発生段階におけるChM1L mRNAの発現解析:図3(c)
C57BL/6マウスの妊娠10日目から出生日までの各日齢の胎児を帝王切開により取り出し、胎児を丸ごと液体窒素で凍結した。凍結した胎児からのtotal RNAの抽出、cDNAの合成、RT−PCRの実施は上述の<成体マウスの各組織におけるChM1L mRNAの発現解析>と同様に実施した。
ChM−I mRNAの解析は、Forward primer(配列番号23)及びreverse primer(配列番号24)を使用して、同条件で実施した。
C57BL/6マウスの妊娠10日目から出生日までの各日齢の胎児を帝王切開により取り出し、胎児を丸ごと液体窒素で凍結した。凍結した胎児からのtotal RNAの抽出、cDNAの合成、RT−PCRの実施は上述の<成体マウスの各組織におけるChM1L mRNAの発現解析>と同様に実施した。
ChM−I mRNAの解析は、Forward primer(配列番号23)及びreverse primer(配列番号24)を使用して、同条件で実施した。
図3(c)に示すように、胎児発生段階におけるChM1L mRNAの発現は、妊娠10日目では非常に弱く、11日目から13日目にかけて発現が上昇している。一方、ChM−Iの発現もChM1Lと同様の発現上昇を示すが、妊娠10日目及び11日目では明らかに、ChM1Lよりも強い発現を示した。従って、胎児発生段階においては、ChM1LはChM−Iよりも遅れて発現が上昇することが明らかとなり、両分子が胎児発生において異なる機能を有することが明らかとなった。
実施例7.抗ChM1Lペプチドポリクローナル抗体の作製
ヒトChM1Lの配列番号2に示した245〜252残基までの配列のC末端にシステインを有するペプチドを化学合成した。この合成ペプチドにMBS/KLH(m−maleimidobenzoyl−N−hydroxysuccinimide ester/keyhole limpet hemocyanin、ベーリンガーマンハイム社)をカップリングさせた。この複合体を生理食塩液に溶解させた後、等量のFCA(フロイント完全アジュバント)を加え、超音波処理してエマルジョンを調製した。このエマルジョンをウサギの皮下に投与し、初回免疫とした。初回免疫から4週間後にFIA(フロイント不完全アジュバント)を用いて大腿筋に追加免疫を行い、その後は約2週間又は約4週間の間隔で皮下投与により4回免疫を行った。追加免疫の間に耳介から部分採血、最終免疫後は全採血を行い血清を分離し、ペプチドカラムによるアフィニティー精製を実施して抗ChM1Lペプチドポリクローナル抗体を得た。
ヒトChM1Lの配列番号2に示した245〜252残基までの配列のC末端にシステインを有するペプチドを化学合成した。この合成ペプチドにMBS/KLH(m−maleimidobenzoyl−N−hydroxysuccinimide ester/keyhole limpet hemocyanin、ベーリンガーマンハイム社)をカップリングさせた。この複合体を生理食塩液に溶解させた後、等量のFCA(フロイント完全アジュバント)を加え、超音波処理してエマルジョンを調製した。このエマルジョンをウサギの皮下に投与し、初回免疫とした。初回免疫から4週間後にFIA(フロイント不完全アジュバント)を用いて大腿筋に追加免疫を行い、その後は約2週間又は約4週間の間隔で皮下投与により4回免疫を行った。追加免疫の間に耳介から部分採血、最終免疫後は全採血を行い血清を分離し、ペプチドカラムによるアフィニティー精製を実施して抗ChM1Lペプチドポリクローナル抗体を得た。
実施例8.ヒト及びマウスChM1Lリコンビナントタンパク質のwestern blot法による解析:図4
リポフェクトアミン試薬(GIBCO BRL社)を用いて、製品説明書に従い、pCAGGS、pCAGGS−hChM1L及びpCAGGS−mChM1L(図4(a)及び(c))あるいは、pCAGGS、pCAGGS−hChM1LHis及びpCAGGS−mChM1LHis(図4(b)及び(d))をCOS7細胞にトランスフェクトした。トランスフェクションしてから約48時間後に、培養上清及び細胞成分を12.5%ゲルでSDS−PAGE(sodium dodecyl sulfate−polyacrylamide gel electrophoresis)を行った後、ニトロセルロース膜にトランスファーした。一次抗体反応及び二次抗体反応を行い、ECLplus試薬(アマシャムファルマシアバイオテク社)を用いて製品説明書に従い、発色反応を行った。pCAGGS、pCAGGS−hChM1L及びpCAGGS−mChM1Lをトランスフェクトした場合のWesternblotは、一次抗体に前述の実施例で述べた抗ChM1Lポリクローナル抗体、二次抗体にhorseradish peroxdase(HRP)で標識された抗ウサギIgG抗体(Dako社)を、pCAGGS、pCAGGS−hChM1LHis及びpCAGGS−mChM1LHisをトランスフェクトした場合のWestern blotには一次抗体に抗Hisタグ抗体(Invitrogen社)、二次抗体にHRPで標識された抗マウスIgG抗体(アマシャムファルマシアバイオテク社)を用いて実施した。
リポフェクトアミン試薬(GIBCO BRL社)を用いて、製品説明書に従い、pCAGGS、pCAGGS−hChM1L及びpCAGGS−mChM1L(図4(a)及び(c))あるいは、pCAGGS、pCAGGS−hChM1LHis及びpCAGGS−mChM1LHis(図4(b)及び(d))をCOS7細胞にトランスフェクトした。トランスフェクションしてから約48時間後に、培養上清及び細胞成分を12.5%ゲルでSDS−PAGE(sodium dodecyl sulfate−polyacrylamide gel electrophoresis)を行った後、ニトロセルロース膜にトランスファーした。一次抗体反応及び二次抗体反応を行い、ECLplus試薬(アマシャムファルマシアバイオテク社)を用いて製品説明書に従い、発色反応を行った。pCAGGS、pCAGGS−hChM1L及びpCAGGS−mChM1Lをトランスフェクトした場合のWesternblotは、一次抗体に前述の実施例で述べた抗ChM1Lポリクローナル抗体、二次抗体にhorseradish peroxdase(HRP)で標識された抗ウサギIgG抗体(Dako社)を、pCAGGS、pCAGGS−hChM1LHis及びpCAGGS−mChM1LHisをトランスフェクトした場合のWestern blotには一次抗体に抗Hisタグ抗体(Invitrogen社)、二次抗体にHRPで標識された抗マウスIgG抗体(アマシャムファルマシアバイオテク社)を用いて実施した。
Western blotと同じサンプルでSDS−PAGEを実施し、クーマシーブリリアントブルー(CBB)で染色した結果を図4(a)及び(b)に示した。
Western blotの結果、すべての培養上清でChM1Lのバンドは確認されなかった。細胞成分では、図4(b)及び(d)に示したようにリコンビナントChM1Lタンパク質は、抗ChM1Lペプチド抗体及び抗Hisタグ抗体のいずれを使用しても、40kDa付近に2本のバンドとして検出された。後述の実施例で詳しく述べるが、糖鎖構造の解析により、高分子量側のバンドはN結合型の糖鎖が結合したフォームであることが確認された。
Western blotの結果、すべての培養上清でChM1Lのバンドは確認されなかった。細胞成分では、図4(b)及び(d)に示したようにリコンビナントChM1Lタンパク質は、抗ChM1Lペプチド抗体及び抗Hisタグ抗体のいずれを使用しても、40kDa付近に2本のバンドとして検出された。後述の実施例で詳しく述べるが、糖鎖構造の解析により、高分子量側のバンドはN結合型の糖鎖が結合したフォームであることが確認された。
実施例9.可溶性ヒトChM1Lリコンビナントタンパク質のwestern blot法による解析:図5
リポフェクトアミン試薬(GIBCO BRL社)を用いて、製品説明書に従い、pCAGGS及びpSF−shChM1LをCOS7細胞にトランスフェクトした。培養上清を12.5%ゲルでSDS−PAGEを行った後、ニトロセルロース膜にトランスファーした。一次抗体には抗FLAGM2抗体(Sigma社)を、二次抗体にはHRPで標識された抗マウスIgG抗体(アマシャムファルマシアバイオテク社)を使用し、ECLplus試薬(アマシャムファルマシアバイオテク社)を用いて製品説明書に従い、発色反応を行った。
リポフェクトアミン試薬(GIBCO BRL社)を用いて、製品説明書に従い、pCAGGS及びpSF−shChM1LをCOS7細胞にトランスフェクトした。培養上清を12.5%ゲルでSDS−PAGEを行った後、ニトロセルロース膜にトランスファーした。一次抗体には抗FLAGM2抗体(Sigma社)を、二次抗体にはHRPで標識された抗マウスIgG抗体(アマシャムファルマシアバイオテク社)を使用し、ECLplus試薬(アマシャムファルマシアバイオテク社)を用いて製品説明書に従い、発色反応を行った。
図5に示すように、可溶性ヒトChM1Lタンパク質は17−18kDa付近に1本のバンドとして検出された。
実施例10.ChM1Lリコンビナントタンパク質の糖鎖構造解析
リポフェクトアミン試薬(GIBCO BRL社)を用いて、製品説明書に従い、pCAGGS−mChM1LHisをCOS7細胞にトランスフェクトした。ディッシュに2%SDSを含むPBSを加え、スクレイパーで細胞を回収し、この懸濁液を95℃で60分間加熱した後、その上清をSDS−OUTTMSDS Precipitation kit(Pierce社)を用いて処理してSDSを除いた。このようにして得られたタンパク質溶液を用いて、Enzymatic Deglycosylation Kit(BIO RAD社)を用いて製品説明書に従って、NANaseII、O−Glycosidase DS及びPNGase Fで上記のタンパク質溶液を処理して、糖鎖消化反応を実施した。この反応液を12.5%ゲルでSDS−PAGEを行った後、ニトロセルロース膜にトランスファーした。一次抗体には抗Hisタグ抗体(Invitrogen社)を、二次抗体にはHRPで標識された抗マウスIgG抗体(アマシャムファルマシアバイオテク社)を使用し、ECLplus試薬(アマシャムファルマシアバイオテク社)を用いて製品説明書に従い、発色反応を行った。
リポフェクトアミン試薬(GIBCO BRL社)を用いて、製品説明書に従い、pCAGGS−mChM1LHisをCOS7細胞にトランスフェクトした。ディッシュに2%SDSを含むPBSを加え、スクレイパーで細胞を回収し、この懸濁液を95℃で60分間加熱した後、その上清をSDS−OUTTMSDS Precipitation kit(Pierce社)を用いて処理してSDSを除いた。このようにして得られたタンパク質溶液を用いて、Enzymatic Deglycosylation Kit(BIO RAD社)を用いて製品説明書に従って、NANaseII、O−Glycosidase DS及びPNGase Fで上記のタンパク質溶液を処理して、糖鎖消化反応を実施した。この反応液を12.5%ゲルでSDS−PAGEを行った後、ニトロセルロース膜にトランスファーした。一次抗体には抗Hisタグ抗体(Invitrogen社)を、二次抗体にはHRPで標識された抗マウスIgG抗体(アマシャムファルマシアバイオテク社)を使用し、ECLplus試薬(アマシャムファルマシアバイオテク社)を用いて製品説明書に従い、発色反応を行った。
図6に示したように、ChM1Lタンパク質の高分子量側のバンドは、PNGase Fで処理した場合(レーン2及び5)にのみ消失した。従って、ChM1Lタンパク質はN結合型の糖鎖で修飾されていることが明らかとなった。
実施例11.肋軟骨におけるChM1Lタンパク質の免疫染色法による解析
約10週齢のC57BL/6マウスを解剖して、whole ribを取り出し、4%パラホルムアルデヒドを含む10mMリン酸緩衝バッファー、pH7.4(PBS)中で固定し、パラフィンで包埋した後、切片を作成した。免疫染色の各工程は、ヒストファインSAB−PO(R)キット(ニチレイ)を用いて製品説明書に従って実施したが、概略は以下のとおりである。脱パラフィン処理の後、3%過酸化水素水で内因性ペルオキシダーゼを消化した。PBSで洗浄し、10%正常ヤギ血清でブロッキングした後、前述の抗ChM1Lペプチド抗体を1/160希釈で加え、4℃で一晩インキュベートした。ネガティブコントロールとしてはウサギIgGを使用した。ビオチン標識抗ウサギIgG抗体及びペルオキシダーゼ標識ストレプトアビジンを反応させた後、3,3−ジアミノベンチジン・4HClを加えて発色反応を行った。核をヘマトキシリンで染色、封入後、観察を実施した。
約10週齢のC57BL/6マウスを解剖して、whole ribを取り出し、4%パラホルムアルデヒドを含む10mMリン酸緩衝バッファー、pH7.4(PBS)中で固定し、パラフィンで包埋した後、切片を作成した。免疫染色の各工程は、ヒストファインSAB−PO(R)キット(ニチレイ)を用いて製品説明書に従って実施したが、概略は以下のとおりである。脱パラフィン処理の後、3%過酸化水素水で内因性ペルオキシダーゼを消化した。PBSで洗浄し、10%正常ヤギ血清でブロッキングした後、前述の抗ChM1Lペプチド抗体を1/160希釈で加え、4℃で一晩インキュベートした。ネガティブコントロールとしてはウサギIgGを使用した。ビオチン標識抗ウサギIgG抗体及びペルオキシダーゼ標識ストレプトアビジンを反応させた後、3,3−ジアミノベンチジン・4HClを加えて発色反応を行った。核をヘマトキシリンで染色、封入後、観察を実施した。
図7に示すように、ChM1Lタンパク質は肋軟骨組織において軟骨細胞周囲に存在する扁平な線維芽細胞様の形態を示す細胞に発現していることが明らかになった。一方、ChM−Iが発現していると報告されている軟骨細胞では発現が認められなかった。
実施例12.ヒトChM1L遺伝子の染色体マッピング
日本DNAデータバンク(DDBJ:DNA data bank of Japan)から、ヒトChM1L遺伝子配列(配列番号1)を用いて、DDBJ全データを対象にしてBLASTNサーチを実施した。その結果、ChM1L遺伝子のゲノム配列としてGenbank accession No.ALO35608を検出した。ALO35608は、ヒトX染色体にマッピングされている配列である。従って、ヒトChM1L遺伝子は、X染色体上に存在することが明らかとなった。
日本DNAデータバンク(DDBJ:DNA data bank of Japan)から、ヒトChM1L遺伝子配列(配列番号1)を用いて、DDBJ全データを対象にしてBLASTNサーチを実施した。その結果、ChM1L遺伝子のゲノム配列としてGenbank accession No.ALO35608を検出した。ALO35608は、ヒトX染色体にマッピングされている配列である。従って、ヒトChM1L遺伝子は、X染色体上に存在することが明らかとなった。
実施例13.可溶性ヒトChM1Lリコンビナントタンパク質の精製
リポフェクトアミン試薬(GIBCO BRL社)を用いて製品説明書に従って、pSF−shChM1LをCOS7細胞にトランスフェクトし、約48時間後に培養上清を回収した。抗FLAG M2アフィニティーゲル(Sigma社)を用いて、アフィニティーカラムを作製し、培養上清をカラムにアプライした。25mM Tris−HCl,150mM NaCl(pH7.4)でカラムを3回洗浄後、0.1Mグリシン−HCl(pH3.5)を用いて溶出し、1/20容量の1MTris−HCl(pH9.5)を用いて溶出液を中和した。
リポフェクトアミン試薬(GIBCO BRL社)を用いて製品説明書に従って、pSF−shChM1LをCOS7細胞にトランスフェクトし、約48時間後に培養上清を回収した。抗FLAG M2アフィニティーゲル(Sigma社)を用いて、アフィニティーカラムを作製し、培養上清をカラムにアプライした。25mM Tris−HCl,150mM NaCl(pH7.4)でカラムを3回洗浄後、0.1Mグリシン−HCl(pH3.5)を用いて溶出し、1/20容量の1MTris−HCl(pH9.5)を用いて溶出液を中和した。
培養上清及び溶出液を用いてSDS−PAGEを行い、クーマシーブリリアントブルー(CBB)染色を実施した結果を図8に示した。培養上清中には多種のタンパク質が存在するが(図8、レーン1)、溶出液中では可溶性ヒトChM1Lタンパク質が約20kDaのバンドとして確認され、上記操作によって可溶性ヒトChM1Lタンパク質が濃縮、精製されたことが明らかになった(図8、レーン2)。
実施例14.ヒト臍帯静脈内皮細胞を用いた血管新生阻害作用の検討
ヒト臍帯静脈内皮細胞(Human Umbilical VeinEndothelial Cells:HUVECs、Clonetics社)は、内皮細胞専用培地(EGM登録商標−2Bullet Kit登録商標、Clonetics社)で培養した。12ウェルプレートに、Growth factor reduced Matrigel(BECTON DICKINSON社)を600uL/ウェルで加えて、37℃で30分間インキュベートした。ヘパリンを含まない内皮細胞専用培地を内皮細胞基本培地(EBM登録商標−2、Clonetics社)で1/8に希釈した培地を用いて、5×104 cells/mLのHUVECsを含む細胞懸濁液を調製した。
ヒト臍帯静脈内皮細胞(Human Umbilical VeinEndothelial Cells:HUVECs、Clonetics社)は、内皮細胞専用培地(EGM登録商標−2Bullet Kit登録商標、Clonetics社)で培養した。12ウェルプレートに、Growth factor reduced Matrigel(BECTON DICKINSON社)を600uL/ウェルで加えて、37℃で30分間インキュベートした。ヘパリンを含まない内皮細胞専用培地を内皮細胞基本培地(EBM登録商標−2、Clonetics社)で1/8に希釈した培地を用いて、5×104 cells/mLのHUVECsを含む細胞懸濁液を調製した。
各被験物質溶液は、0.1Mグリシン−HCl(pH3.5)に1/20容量の1M Tris−HCl(pH9.5)を加えた溶液で調製し、200uL/ウェルの容量で処理を行った。陰性対象として上記のバッファー及びBSA(bovin serum albumin)を20ug/ウェルで、陽性対象物質としてPletelet factor 4(PF−4、CHEMICON社)を1及び10ug/ウェルで、可溶性ヒトChM1Lリコンビナントタンパク質は実施例13の溶出画分を10及び20ug/ウェルで処理した。細胞懸濁液2mL(1×105 cells)と各被験物質溶液200uLを混合して、Growth factor reduced Matrigelでコートした12ウェルプレートにシーディングし、9時間後に管腔様構造の形成を観察して写真を撮影した。その結果を図9に示した。陰性対象ではHUVECsが管腔様構造を形成しているが(図9(a)及び(b))、ChM1Lを20ug/ウェルで処理した場合には(図9(d))、陰性対象と比較して管腔様構造の形成が阻害された。
従って、ChM1Lは血管新生阻害作用を有することが明らかとなり、可溶性のChM1Lポリペプチドは糖尿病性網膜症、癌、慢性関節リウマチなどの血管新生を伴う疾患の治療薬として適用できることが明らかとなった。
Claims (27)
- 配列番号2で表されるアミノ酸配列を実質的に含むポリペプチドをコードするヒト遺伝子。
- 配列番号4で表されるアミノ酸配列を実質的に含むポリペプチドをコードするマウス遺伝子。
- 配列番号6で表されるアミノ酸配列を実質的に含むポリペプチドをコードするラット遺伝子。
- 配列番号1で表される塩基配列を有する請求項1に記載のヒト遺伝子。
- 配列番号3で表される塩基配列を有する請求項2に記載のマウス遺伝子。
- 配列番号5で表される塩基配列を有する請求項3に記載のラット遺伝子。
- 配列番号2で表されるアミノ酸配列を実質的に含む、ヒト遺伝子がコードするポリペプチド。
- 配列番号4で表されるアミノ酸配列を実質的に含む、マウス遺伝子がコードするポリペプチド。
- 配列番号6で表されるアミノ酸配列を実質的に含む、ラット遺伝子がコードするポリペプチド。
- 請求項1〜6のいずれか一項に記載の遺伝子の少なくとも一部とハイブリダイズするオリゴヌクレオチドプローブ。
- 請求項1〜6のいずれか一項に記載の遺伝子を含む組換え体DNA。
- 請求項11に記載の組換え体DNAによって形質転換された形質転換体。
- 請求項12に記載の形質転換体を培養し、得られる培養物からヒト、マウス及びラット遺伝子がコードするポリペプチドを採取することを特徴とする前記ポリペプチドの製造方法。
- 請求項7〜9のいずれか一項に記載のポリペプチドと特異的に反応するモノクローナル抗体。
- 請求項7〜9のいずれか一項に記載のポリペプチドと特異的に反応するポリクローナル抗体。
- 請求項7〜9のいずれか一項に記載のポリペプチドで免疫された抗体産生細胞とミエローマ細胞とを融合させることにより得られる、請求項14に記載のモノクローナル抗体を産生するハイブリドーマ。
- 請求項10に記載のオリゴヌクレオチドプローブを含む遺伝子の検出試薬。
- 請求項7〜9のいずれか一項に記載のポリペプチド、並びに請求項14に記載のモノクローナル抗体及び/又は請求項15に記載のポリクローナル抗体を含む診断用キット。
- 請求項7〜9のいずれか一項に記載のポリペプチドからなる医薬組成物。
- 請求項14に記載のモノクローナル抗体又は請求項15に記載のポリクローナル抗体からなる医薬組成物。
- 請求項1〜6に記載の遺伝子の一部と特異的にハイブリダイズするアンチセンスオリゴヌクレオチドからなる医薬組成物。
- 請求項1〜6に記載の遺伝子の少なくとも一部を含む、遺伝子治療に利用しうる核酸からなる医薬組成物。
- 請求項1あるいは4に記載のX染色体上に存在することを特徴とするヒト遺伝子。
- 請求項7〜9に記載のポリペプチドが細胞膜結合型であることを特徴とするポリペプチド。
- 請求項24に記載の細胞膜結合型ポリペプチドをコードする遺伝子。
- 請求項7〜9に記載のポリペプチドが血管新生阻害作用を有することを特徴とするポリペプチド。
- 請求項26に記載の血管新生阻害作用を有するポリペプチドをコードする遺伝子。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2006123920A JP2006296429A (ja) | 1999-09-29 | 2006-04-27 | 新規なポリペプチド及びそれをコードする遺伝子 |
Applications Claiming Priority (2)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP27594799 | 1999-09-29 | ||
| JP2006123920A JP2006296429A (ja) | 1999-09-29 | 2006-04-27 | 新規なポリペプチド及びそれをコードする遺伝子 |
Related Parent Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2001-526939A Division JPWO2001023557A1 (ja) | 1999-09-29 | 2000-09-29 | 新規なポリペプチド及びそれをコードする遺伝子 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2006296429A true JP2006296429A (ja) | 2006-11-02 |
| JP2006296429A5 JP2006296429A5 (ja) | 2007-09-06 |
Family
ID=37465286
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2006123920A Pending JP2006296429A (ja) | 1999-09-29 | 2006-04-27 | 新規なポリペプチド及びそれをコードする遺伝子 |
Country Status (1)
| Country | Link |
|---|---|
| JP (1) | JP2006296429A (ja) |
-
2006
- 2006-04-27 JP JP2006123920A patent/JP2006296429A/ja active Pending
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| Byrd et al. | Tpr, a large coiled coil protein whose amino terminus is involved in activation of oncogenic kinases, is localized to the cytoplasmic surface of the nuclear pore complex. | |
| US5607918A (en) | Vascular endothelial growth factor-B and DNA coding therefor | |
| US20080319165A1 (en) | Nucleic acid molecule comprising a nucleic acid sequence coding for a chemokine, a neuropeptide precursor, or at least one neuropeptide | |
| D'Urso et al. | Ins and outs of peripheral myelin protein‐22: mapping transmembrane topology and intracellular sorting | |
| EP1219710B1 (en) | Novel polypeptides and genes encoding the same | |
| JPH11507513A (ja) | C5a様7膜貫通受容体 | |
| JP4315257B2 (ja) | 新規コンドロイチン硫酸プロテオグリカン、そのコア蛋白質、それをコードするdnaおよびそれに対する抗体 | |
| JPH04500603A (ja) | クローン化腎炎抗原 | |
| JP2002325584A (ja) | 組換えヒトiv型コラーゲンペプチドとその製造方法 | |
| AU714793B2 (en) | Novel stress proteins | |
| JPH09194502A (ja) | 新規コンドロイチン硫酸プロテオグリカン、そのコア蛋白質、それをコードするdnaおよびそれに対する抗体 | |
| JP4041913B2 (ja) | 抗腫瘍タンパク質およびその遺伝子 | |
| EP1132468B1 (en) | MAST CELL-SPECIFIC SIGNAL TRANSDUCING MOLECULES AND cDNAS THEREOF | |
| JP2000135090A (ja) | ヒトH37タンパク質と、このタンパク質をコードする cDNA | |
| JPWO2001023557A1 (ja) | 新規なポリペプチド及びそれをコードする遺伝子 | |
| JP2000095795A (ja) | プロテオグリカンのコアタンパク質のポリペプチド及びそれをコードするdna | |
| EP1148125B1 (en) | Human nucleoprotein having a ww domain and polynucleotide encoding the same | |
| Ardell et al. | Molecular Analysis of the Human GAR1 Gene: A Candidate Gene for Retinal Degeneration | |
| JP2000197489A (ja) | ドレブリン様配列とSH3ドメインを有するヒト蛋白質とこの蛋白質をコ―ドするcDNA | |
| JPH09182588A (ja) | クラスリン結合タンパク遺伝子 | |
| JP2002020311A (ja) | 新規な軟骨形成促進剤 | |
| WO2002057444A1 (fr) | Genes associes a l'apoptose humaine et proteines produites associees a l'apoptose humaine | |
| WO2001090355A1 (fr) | Canal sodium humain scn12a et scn8a | |
| KR20050092657A (ko) | 근육에서 특이적으로 발현되는 유전자 | |
| JP2004535797A (ja) | D52およびra006核酸およびポリペプチドの新規機能 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A521 | Written amendment |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20070719 |
|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20070719 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20070918 |
|
| A02 | Decision of refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A02 Effective date: 20071218 |