JP2012105669A - マイクロrnaによるオンコジーンの調節 - Google Patents
マイクロrnaによるオンコジーンの調節 Download PDFInfo
- Publication number
- JP2012105669A JP2012105669A JP2012039065A JP2012039065A JP2012105669A JP 2012105669 A JP2012105669 A JP 2012105669A JP 2012039065 A JP2012039065 A JP 2012039065A JP 2012039065 A JP2012039065 A JP 2012039065A JP 2012105669 A JP2012105669 A JP 2012105669A
- Authority
- JP
- Japan
- Prior art keywords
- cancer
- mirna
- cell
- cells
- ras
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Pending
Links
- 108091070501 miRNA Proteins 0.000 title abstract description 140
- 108700020796 Oncogene Proteins 0.000 title abstract description 46
- 230000033228 biological regulation Effects 0.000 title description 10
- 239000002679 microRNA Substances 0.000 abstract description 191
- 206010028980 Neoplasm Diseases 0.000 abstract description 143
- 230000014509 gene expression Effects 0.000 abstract description 133
- 150000007523 nucleic acids Chemical class 0.000 abstract description 117
- 102000039446 nucleic acids Human genes 0.000 abstract description 108
- 108020004707 nucleic acids Proteins 0.000 abstract description 108
- 201000011510 cancer Diseases 0.000 abstract description 89
- 239000000203 mixture Substances 0.000 abstract description 86
- 238000000034 method Methods 0.000 abstract description 77
- 241000282414 Homo sapiens Species 0.000 abstract description 62
- 102000043276 Oncogene Human genes 0.000 abstract description 30
- 230000001105 regulatory effect Effects 0.000 abstract description 28
- 238000011282 treatment Methods 0.000 abstract description 26
- 208000024891 symptom Diseases 0.000 abstract description 17
- 239000012634 fragment Substances 0.000 abstract description 16
- 230000002265 prevention Effects 0.000 abstract description 11
- 230000004071 biological effect Effects 0.000 abstract description 5
- 108091007428 primary miRNA Proteins 0.000 abstract description 2
- 108091023663 let-7 stem-loop Proteins 0.000 description 223
- 108091063478 let-7-1 stem-loop Proteins 0.000 description 223
- 108091049777 let-7-2 stem-loop Proteins 0.000 description 223
- 210000004027 cell Anatomy 0.000 description 208
- 101100127892 Caenorhabditis elegans let-60 gene Proteins 0.000 description 116
- 102000016914 ras Proteins Human genes 0.000 description 116
- 101150040459 RAS gene Proteins 0.000 description 97
- 108090000623 proteins and genes Proteins 0.000 description 97
- 108020005345 3' Untranslated Regions Proteins 0.000 description 94
- 101150076031 RAS1 gene Proteins 0.000 description 90
- 108700011259 MicroRNAs Proteins 0.000 description 71
- 210000001519 tissue Anatomy 0.000 description 67
- 108091062546 miR-84 stem-loop Proteins 0.000 description 65
- 241001465754 Metazoa Species 0.000 description 43
- 101000744505 Homo sapiens GTPase NRas Proteins 0.000 description 42
- 238000009472 formulation Methods 0.000 description 40
- 102100039788 GTPase NRas Human genes 0.000 description 37
- 208000020816 lung neoplasm Diseases 0.000 description 37
- 125000003729 nucleotide group Chemical group 0.000 description 37
- 239000002773 nucleotide Substances 0.000 description 36
- 108020004414 DNA Proteins 0.000 description 35
- 239000013598 vector Substances 0.000 description 31
- 206010058467 Lung neoplasm malignant Diseases 0.000 description 30
- 201000005202 lung cancer Diseases 0.000 description 29
- 239000000523 sample Substances 0.000 description 28
- 108020004999 messenger RNA Proteins 0.000 description 26
- 108010014186 ras Proteins Proteins 0.000 description 26
- 230000000295 complement effect Effects 0.000 description 24
- 230000000694 effects Effects 0.000 description 24
- 102000004169 proteins and genes Human genes 0.000 description 23
- 101000584612 Homo sapiens GTPase KRas Proteins 0.000 description 21
- 210000003905 vulva Anatomy 0.000 description 21
- 230000009368 gene silencing by RNA Effects 0.000 description 19
- 108091053410 let-7 family Proteins 0.000 description 19
- 108091032973 (ribonucleotides)n+m Proteins 0.000 description 18
- 102100038895 Myc proto-oncogene protein Human genes 0.000 description 18
- 238000012228 RNA interference-mediated gene silencing Methods 0.000 description 18
- 238000001727 in vivo Methods 0.000 description 18
- 230000035772 mutation Effects 0.000 description 18
- 230000002018 overexpression Effects 0.000 description 18
- 101100181931 Caenorhabditis elegans lin-41 gene Proteins 0.000 description 17
- 108091007772 MIRLET7C Proteins 0.000 description 16
- 108091053735 lin-4 stem-loop Proteins 0.000 description 16
- 108091032363 lin-4-1 stem-loop Proteins 0.000 description 16
- 108091028008 lin-4-2 stem-loop Proteins 0.000 description 16
- 208000037841 lung tumor Diseases 0.000 description 16
- 210000001848 seam cell Anatomy 0.000 description 16
- 102100021569 Apoptosis regulator Bcl-2 Human genes 0.000 description 15
- 101001030211 Homo sapiens Myc proto-oncogene protein Proteins 0.000 description 15
- -1 TERT Proteins 0.000 description 15
- 102100030708 GTPase KRas Human genes 0.000 description 14
- 238000004458 analytical method Methods 0.000 description 14
- 239000013612 plasmid Substances 0.000 description 14
- 230000015572 biosynthetic process Effects 0.000 description 13
- HVYWMOMLDIMFJA-DPAQBDIFSA-N cholesterol Chemical group C1C=C2C[C@@H](O)CC[C@]2(C)[C@@H]2[C@@H]1[C@@H]1CC[C@H]([C@H](C)CCCC(C)C)[C@@]1(C)CC2 HVYWMOMLDIMFJA-DPAQBDIFSA-N 0.000 description 13
- 238000002474 experimental method Methods 0.000 description 13
- 230000001965 increasing effect Effects 0.000 description 13
- 238000003752 polymerase chain reaction Methods 0.000 description 13
- 238000001890 transfection Methods 0.000 description 13
- 241000700605 Viruses Species 0.000 description 12
- 238000012217 deletion Methods 0.000 description 12
- 230000037430 deletion Effects 0.000 description 12
- 201000010099 disease Diseases 0.000 description 12
- 208000037265 diseases, disorders, signs and symptoms Diseases 0.000 description 12
- 239000003623 enhancer Substances 0.000 description 12
- 239000005090 green fluorescent protein Substances 0.000 description 12
- 238000003780 insertion Methods 0.000 description 12
- 230000037431 insertion Effects 0.000 description 12
- 210000004072 lung Anatomy 0.000 description 12
- 238000002703 mutagenesis Methods 0.000 description 12
- 231100000350 mutagenesis Toxicity 0.000 description 12
- 101000971171 Homo sapiens Apoptosis regulator Bcl-2 Proteins 0.000 description 11
- 238000011161 development Methods 0.000 description 11
- 230000003828 downregulation Effects 0.000 description 11
- 239000003814 drug Substances 0.000 description 11
- 239000003112 inhibitor Substances 0.000 description 11
- 108091091807 let-7a stem-loop Proteins 0.000 description 11
- 108091057746 let-7a-4 stem-loop Proteins 0.000 description 11
- 108091028376 let-7a-5 stem-loop Proteins 0.000 description 11
- 108091024393 let-7a-6 stem-loop Proteins 0.000 description 11
- 108091091174 let-7a-7 stem-loop Proteins 0.000 description 11
- 230000037361 pathway Effects 0.000 description 11
- 229920000642 polymer Polymers 0.000 description 11
- 208000026310 Breast neoplasm Diseases 0.000 description 10
- 101000584633 Homo sapiens GTPase HRas Proteins 0.000 description 10
- 241000699666 Mus <mouse, genus> Species 0.000 description 10
- 108020004459 Small interfering RNA Proteins 0.000 description 10
- 206010047289 Ventricular extrasystoles Diseases 0.000 description 10
- 230000024245 cell differentiation Effects 0.000 description 10
- 230000004663 cell proliferation Effects 0.000 description 10
- 230000012010 growth Effects 0.000 description 10
- 238000000338 in vitro Methods 0.000 description 10
- 230000002401 inhibitory effect Effects 0.000 description 10
- 239000002243 precursor Substances 0.000 description 10
- 230000008569 process Effects 0.000 description 10
- 210000004881 tumor cell Anatomy 0.000 description 10
- 230000003612 virological effect Effects 0.000 description 10
- 238000005129 volume perturbation calorimetry Methods 0.000 description 10
- 206010009944 Colon cancer Diseases 0.000 description 9
- 101710113436 GTPase KRas Proteins 0.000 description 9
- 230000033115 angiogenesis Effects 0.000 description 9
- 230000018109 developmental process Effects 0.000 description 9
- 230000006870 function Effects 0.000 description 9
- 230000001939 inductive effect Effects 0.000 description 9
- 239000013642 negative control Substances 0.000 description 9
- 238000011002 quantification Methods 0.000 description 9
- 238000002864 sequence alignment Methods 0.000 description 9
- 230000004083 survival effect Effects 0.000 description 9
- 230000001225 therapeutic effect Effects 0.000 description 9
- 206010006187 Breast cancer Diseases 0.000 description 8
- 101100347613 Caenorhabditis elegans unc-54 gene Proteins 0.000 description 8
- 230000027455 binding Effects 0.000 description 8
- 208000029742 colonic neoplasm Diseases 0.000 description 8
- 230000004069 differentiation Effects 0.000 description 8
- 230000004927 fusion Effects 0.000 description 8
- 210000005260 human cell Anatomy 0.000 description 8
- 230000005764 inhibitory process Effects 0.000 description 8
- 239000007924 injection Substances 0.000 description 8
- 238000002347 injection Methods 0.000 description 8
- 230000007246 mechanism Effects 0.000 description 8
- 230000036961 partial effect Effects 0.000 description 8
- 239000000047 product Substances 0.000 description 8
- 230000009261 transgenic effect Effects 0.000 description 8
- 208000003174 Brain Neoplasms Diseases 0.000 description 7
- 241000282412 Homo Species 0.000 description 7
- 108091028043 Nucleic acid sequence Proteins 0.000 description 7
- 108700008625 Reporter Genes Proteins 0.000 description 7
- 230000004913 activation Effects 0.000 description 7
- 238000009792 diffusion process Methods 0.000 description 7
- 239000003937 drug carrier Substances 0.000 description 7
- 239000007943 implant Substances 0.000 description 7
- 108700042226 ras Genes Proteins 0.000 description 7
- 238000011144 upstream manufacturing Methods 0.000 description 7
- 108091026821 Artificial microRNA Proteins 0.000 description 6
- 206010005003 Bladder cancer Diseases 0.000 description 6
- 101100181921 Caenorhabditis elegans lin-31 gene Proteins 0.000 description 6
- 102100029974 GTPase HRas Human genes 0.000 description 6
- 241000287828 Gallus gallus Species 0.000 description 6
- 102100031181 Glyceraldehyde-3-phosphate dehydrogenase Human genes 0.000 description 6
- 102100029283 Hepatocyte nuclear factor 3-alpha Human genes 0.000 description 6
- 101001062353 Homo sapiens Hepatocyte nuclear factor 3-alpha Proteins 0.000 description 6
- 206010025323 Lymphomas Diseases 0.000 description 6
- 241000283984 Rodentia Species 0.000 description 6
- 208000007097 Urinary Bladder Neoplasms Diseases 0.000 description 6
- 208000006105 Uterine Cervical Neoplasms Diseases 0.000 description 6
- 230000002159 abnormal effect Effects 0.000 description 6
- 230000006907 apoptotic process Effects 0.000 description 6
- 238000003556 assay Methods 0.000 description 6
- 231100000504 carcinogenesis Toxicity 0.000 description 6
- 238000002512 chemotherapy Methods 0.000 description 6
- 235000012000 cholesterol Nutrition 0.000 description 6
- 210000001072 colon Anatomy 0.000 description 6
- 229940079593 drug Drugs 0.000 description 6
- 108020004445 glyceraldehyde-3-phosphate dehydrogenase Proteins 0.000 description 6
- 102000049555 human KRAS Human genes 0.000 description 6
- 238000009396 hybridization Methods 0.000 description 6
- 238000010166 immunofluorescence Methods 0.000 description 6
- 230000001418 larval effect Effects 0.000 description 6
- 239000002502 liposome Substances 0.000 description 6
- 239000011159 matrix material Substances 0.000 description 6
- 230000004048 modification Effects 0.000 description 6
- 238000012986 modification Methods 0.000 description 6
- 238000011275 oncology therapy Methods 0.000 description 6
- 210000000056 organ Anatomy 0.000 description 6
- 206010033675 panniculitis Diseases 0.000 description 6
- 239000012071 phase Substances 0.000 description 6
- 102000005962 receptors Human genes 0.000 description 6
- 108020003175 receptors Proteins 0.000 description 6
- 230000002829 reductive effect Effects 0.000 description 6
- 210000000130 stem cell Anatomy 0.000 description 6
- 210000004304 subcutaneous tissue Anatomy 0.000 description 6
- 238000006467 substitution reaction Methods 0.000 description 6
- 230000001629 suppression Effects 0.000 description 6
- 238000001356 surgical procedure Methods 0.000 description 6
- 238000003786 synthesis reaction Methods 0.000 description 6
- 241001430294 unidentified retrovirus Species 0.000 description 6
- 201000005112 urinary bladder cancer Diseases 0.000 description 6
- 108700028369 Alleles Proteins 0.000 description 5
- 101100181929 Caenorhabditis elegans lin-3 gene Proteins 0.000 description 5
- 208000005623 Carcinogenesis Diseases 0.000 description 5
- 241000255581 Drosophila <fruit fly, genus> Species 0.000 description 5
- WQZGKKKJIJFFOK-GASJEMHNSA-N Glucose Natural products OC[C@H]1OC(O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-GASJEMHNSA-N 0.000 description 5
- 108091054455 MAP kinase family Proteins 0.000 description 5
- 102000043136 MAP kinase family Human genes 0.000 description 5
- 206010027476 Metastases Diseases 0.000 description 5
- 208000003445 Mouth Neoplasms Diseases 0.000 description 5
- 108091034117 Oligonucleotide Proteins 0.000 description 5
- 206010033128 Ovarian cancer Diseases 0.000 description 5
- 206010061535 Ovarian neoplasm Diseases 0.000 description 5
- 102100033237 Pro-epidermal growth factor Human genes 0.000 description 5
- 101710098940 Pro-epidermal growth factor Proteins 0.000 description 5
- 102000052575 Proto-Oncogene Human genes 0.000 description 5
- 108700020978 Proto-Oncogene Proteins 0.000 description 5
- 240000004808 Saccharomyces cerevisiae Species 0.000 description 5
- 235000014680 Saccharomyces cerevisiae Nutrition 0.000 description 5
- 208000000453 Skin Neoplasms Diseases 0.000 description 5
- FAPWRFPIFSIZLT-UHFFFAOYSA-M Sodium chloride Chemical compound [Na+].[Cl-] FAPWRFPIFSIZLT-UHFFFAOYSA-M 0.000 description 5
- 230000003213 activating effect Effects 0.000 description 5
- 230000001580 bacterial effect Effects 0.000 description 5
- 230000036952 cancer formation Effects 0.000 description 5
- 238000004587 chromatography analysis Methods 0.000 description 5
- 239000002299 complementary DNA Substances 0.000 description 5
- 150000001875 compounds Chemical class 0.000 description 5
- 230000007423 decrease Effects 0.000 description 5
- 230000003628 erosive effect Effects 0.000 description 5
- 239000013604 expression vector Substances 0.000 description 5
- 238000001794 hormone therapy Methods 0.000 description 5
- 102000047526 human NRAS Human genes 0.000 description 5
- 238000009169 immunotherapy Methods 0.000 description 5
- 230000009401 metastasis Effects 0.000 description 5
- 238000002360 preparation method Methods 0.000 description 5
- 238000000746 purification Methods 0.000 description 5
- 238000003753 real-time PCR Methods 0.000 description 5
- 201000000849 skin cancer Diseases 0.000 description 5
- 239000002904 solvent Substances 0.000 description 5
- 238000013268 sustained release Methods 0.000 description 5
- 239000012730 sustained-release form Substances 0.000 description 5
- 230000008685 targeting Effects 0.000 description 5
- 201000002510 thyroid cancer Diseases 0.000 description 5
- 238000013518 transcription Methods 0.000 description 5
- 230000035897 transcription Effects 0.000 description 5
- 239000003981 vehicle Substances 0.000 description 5
- 108091012583 BCL2 Proteins 0.000 description 4
- 101100016516 Caenorhabditis elegans hbl-1 gene Proteins 0.000 description 4
- 206010008342 Cervix carcinoma Diseases 0.000 description 4
- 102100022874 Dexamethasone-induced Ras-related protein 1 Human genes 0.000 description 4
- 241000196324 Embryophyta Species 0.000 description 4
- 206010014733 Endometrial cancer Diseases 0.000 description 4
- 206010014759 Endometrial neoplasm Diseases 0.000 description 4
- 102000004190 Enzymes Human genes 0.000 description 4
- 108090000790 Enzymes Proteins 0.000 description 4
- 208000000461 Esophageal Neoplasms Diseases 0.000 description 4
- 101000620808 Homo sapiens Dexamethasone-induced Ras-related protein 1 Proteins 0.000 description 4
- 206010020843 Hyperthermia Diseases 0.000 description 4
- 108091064430 Mir-48 Proteins 0.000 description 4
- 208000034578 Multiple myelomas Diseases 0.000 description 4
- 238000000636 Northern blotting Methods 0.000 description 4
- 206010030155 Oesophageal carcinoma Diseases 0.000 description 4
- 229910019142 PO4 Inorganic materials 0.000 description 4
- 206010061902 Pancreatic neoplasm Diseases 0.000 description 4
- 206010035226 Plasma cell myeloma Diseases 0.000 description 4
- 206010060862 Prostate cancer Diseases 0.000 description 4
- 208000000236 Prostatic Neoplasms Diseases 0.000 description 4
- 208000005718 Stomach Neoplasms Diseases 0.000 description 4
- IQFYYKKMVGJFEH-XLPZGREQSA-N Thymidine Chemical compound O=C1NC(=O)C(C)=CN1[C@@H]1O[C@H](CO)[C@@H](O)C1 IQFYYKKMVGJFEH-XLPZGREQSA-N 0.000 description 4
- 208000024770 Thyroid neoplasm Diseases 0.000 description 4
- ISAKRJDGNUQOIC-UHFFFAOYSA-N Uracil Chemical compound O=C1C=CNC(=O)N1 ISAKRJDGNUQOIC-UHFFFAOYSA-N 0.000 description 4
- 102000005789 Vascular Endothelial Growth Factors Human genes 0.000 description 4
- 108010019530 Vascular Endothelial Growth Factors Proteins 0.000 description 4
- RJURFGZVJUQBHK-UHFFFAOYSA-N actinomycin D Natural products CC1OC(=O)C(C(C)C)N(C)C(=O)CN(C)C(=O)C2CCCN2C(=O)C(C(C)C)NC(=O)C1NC(=O)C1=C(N)C(=O)C(C)=C2OC(C(C)=CC=C3C(=O)NC4C(=O)NC(C(N5CCCC5C(=O)N(C)CC(=O)N(C)C(C(C)C)C(=O)OC4C)=O)C(C)C)=C3N=C21 RJURFGZVJUQBHK-UHFFFAOYSA-N 0.000 description 4
- 239000000443 aerosol Substances 0.000 description 4
- 230000001093 anti-cancer Effects 0.000 description 4
- 230000000692 anti-sense effect Effects 0.000 description 4
- 230000009286 beneficial effect Effects 0.000 description 4
- 230000004700 cellular uptake Effects 0.000 description 4
- 201000010881 cervical cancer Diseases 0.000 description 4
- 238000006243 chemical reaction Methods 0.000 description 4
- 230000002759 chromosomal effect Effects 0.000 description 4
- 238000010367 cloning Methods 0.000 description 4
- OPTASPLRGRRNAP-UHFFFAOYSA-N cytosine Chemical compound NC=1C=CNC(=O)N=1 OPTASPLRGRRNAP-UHFFFAOYSA-N 0.000 description 4
- 230000001419 dependent effect Effects 0.000 description 4
- 238000001514 detection method Methods 0.000 description 4
- 239000000839 emulsion Substances 0.000 description 4
- 229940088598 enzyme Drugs 0.000 description 4
- 201000004101 esophageal cancer Diseases 0.000 description 4
- 239000013613 expression plasmid Substances 0.000 description 4
- 206010017758 gastric cancer Diseases 0.000 description 4
- 239000000499 gel Substances 0.000 description 4
- 230000002068 genetic effect Effects 0.000 description 4
- 210000004602 germ cell Anatomy 0.000 description 4
- UYTPUPDQBNUYGX-UHFFFAOYSA-N guanine Chemical compound O=C1NC(N)=NC2=C1N=CN2 UYTPUPDQBNUYGX-UHFFFAOYSA-N 0.000 description 4
- 238000002744 homologous recombination Methods 0.000 description 4
- 230000006801 homologous recombination Effects 0.000 description 4
- 230000036031 hyperthermia Effects 0.000 description 4
- 238000001990 intravenous administration Methods 0.000 description 4
- 238000002647 laser therapy Methods 0.000 description 4
- 101150065956 let-60 gene Proteins 0.000 description 4
- 231100000518 lethal Toxicity 0.000 description 4
- 230000001665 lethal effect Effects 0.000 description 4
- 208000032839 leukemia Diseases 0.000 description 4
- 208000012987 lip and oral cavity carcinoma Diseases 0.000 description 4
- 150000002632 lipids Chemical class 0.000 description 4
- 201000007270 liver cancer Diseases 0.000 description 4
- 208000014018 liver neoplasm Diseases 0.000 description 4
- 210000005265 lung cell Anatomy 0.000 description 4
- 208000015486 malignant pancreatic neoplasm Diseases 0.000 description 4
- 210000004962 mammalian cell Anatomy 0.000 description 4
- 230000001404 mediated effect Effects 0.000 description 4
- 108091064282 miR-125 stem-loop Proteins 0.000 description 4
- 108091037066 miR-125-1 stem-loop Proteins 0.000 description 4
- 108091062107 miR-125-2 stem-loop Proteins 0.000 description 4
- 108091079767 miR-125-3 stem-loop Proteins 0.000 description 4
- 108091076178 miR-48 stem-loop Proteins 0.000 description 4
- 108091084599 miR-48-1 stem-loop Proteins 0.000 description 4
- 108091074333 miR-48-2 stem-loop Proteins 0.000 description 4
- 238000002493 microarray Methods 0.000 description 4
- 238000010208 microarray analysis Methods 0.000 description 4
- 239000003094 microcapsule Substances 0.000 description 4
- 238000010369 molecular cloning Methods 0.000 description 4
- 239000000346 nonvolatile oil Substances 0.000 description 4
- 201000008968 osteosarcoma Diseases 0.000 description 4
- 201000002528 pancreatic cancer Diseases 0.000 description 4
- 208000008443 pancreatic carcinoma Diseases 0.000 description 4
- 239000010452 phosphate Substances 0.000 description 4
- 230000008488 polyadenylation Effects 0.000 description 4
- 239000003755 preservative agent Substances 0.000 description 4
- 108090000765 processed proteins & peptides Proteins 0.000 description 4
- 238000012545 processing Methods 0.000 description 4
- 238000001959 radiotherapy Methods 0.000 description 4
- 230000019491 signal transduction Effects 0.000 description 4
- 230000011664 signaling Effects 0.000 description 4
- 239000000243 solution Substances 0.000 description 4
- 241000894007 species Species 0.000 description 4
- 206010041823 squamous cell carcinoma Diseases 0.000 description 4
- 201000011549 stomach cancer Diseases 0.000 description 4
- 238000007920 subcutaneous administration Methods 0.000 description 4
- 239000000725 suspension Substances 0.000 description 4
- 229940124597 therapeutic agent Drugs 0.000 description 4
- 230000004565 tumor cell growth Effects 0.000 description 4
- 108020004463 18S ribosomal RNA Proteins 0.000 description 3
- 244000105975 Antidesma platyphyllum Species 0.000 description 3
- 208000003950 B-cell lymphoma Diseases 0.000 description 3
- 108091032955 Bacterial small RNA Proteins 0.000 description 3
- 208000001333 Colorectal Neoplasms Diseases 0.000 description 3
- 241000588724 Escherichia coli Species 0.000 description 3
- 102100033067 Growth factor receptor-bound protein 2 Human genes 0.000 description 3
- 208000002250 Hematologic Neoplasms Diseases 0.000 description 3
- 101000871017 Homo sapiens Growth factor receptor-bound protein 2 Proteins 0.000 description 3
- 101001052493 Homo sapiens Mitogen-activated protein kinase 1 Proteins 0.000 description 3
- 239000012097 Lipofectamine 2000 Substances 0.000 description 3
- 208000031422 Lymphocytic Chronic B-Cell Leukemia Diseases 0.000 description 3
- 101150117157 MYO3 gene Proteins 0.000 description 3
- 102100024193 Mitogen-activated protein kinase 1 Human genes 0.000 description 3
- 101710135898 Myc proto-oncogene protein Proteins 0.000 description 3
- 241000244206 Nematoda Species 0.000 description 3
- 206010029260 Neuroblastoma Diseases 0.000 description 3
- 101710163270 Nuclease Proteins 0.000 description 3
- 239000013614 RNA sample Substances 0.000 description 3
- 206010039491 Sarcoma Diseases 0.000 description 3
- 208000024313 Testicular Neoplasms Diseases 0.000 description 3
- 206010057644 Testis cancer Diseases 0.000 description 3
- 101710150448 Transcriptional regulator Myc Proteins 0.000 description 3
- 108091026822 U6 spliceosomal RNA Proteins 0.000 description 3
- JLCPHMBAVCMARE-UHFFFAOYSA-N [3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[5-(2-amino-6-oxo-1H-purin-9-yl)-3-[[3-[[3-[[3-[[3-[[3-[[5-(2-amino-6-oxo-1H-purin-9-yl)-3-[[5-(2-amino-6-oxo-1H-purin-9-yl)-3-hydroxyoxolan-2-yl]methoxy-hydroxyphosphoryl]oxyoxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxyoxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methyl [5-(6-aminopurin-9-yl)-2-(hydroxymethyl)oxolan-3-yl] hydrogen phosphate Polymers Cc1cn(C2CC(OP(O)(=O)OCC3OC(CC3OP(O)(=O)OCC3OC(CC3O)n3cnc4c3nc(N)[nH]c4=O)n3cnc4c3nc(N)[nH]c4=O)C(COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3CO)n3cnc4c(N)ncnc34)n3ccc(N)nc3=O)n3cnc4c(N)ncnc34)n3ccc(N)nc3=O)n3ccc(N)nc3=O)n3ccc(N)nc3=O)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)n3cc(C)c(=O)[nH]c3=O)n3cc(C)c(=O)[nH]c3=O)n3ccc(N)nc3=O)n3cc(C)c(=O)[nH]c3=O)n3cnc4c3nc(N)[nH]c4=O)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)O2)c(=O)[nH]c1=O JLCPHMBAVCMARE-UHFFFAOYSA-N 0.000 description 3
- 239000003963 antioxidant agent Substances 0.000 description 3
- 210000004369 blood Anatomy 0.000 description 3
- 239000008280 blood Substances 0.000 description 3
- 210000000481 breast Anatomy 0.000 description 3
- 238000004113 cell culture Methods 0.000 description 3
- 230000011712 cell development Effects 0.000 description 3
- 230000032823 cell division Effects 0.000 description 3
- 210000000170 cell membrane Anatomy 0.000 description 3
- 239000003795 chemical substances by application Substances 0.000 description 3
- 238000000546 chi-square test Methods 0.000 description 3
- 238000003776 cleavage reaction Methods 0.000 description 3
- 230000001276 controlling effect Effects 0.000 description 3
- 230000000875 corresponding effect Effects 0.000 description 3
- 230000034994 death Effects 0.000 description 3
- 239000008121 dextrose Substances 0.000 description 3
- 235000013601 eggs Nutrition 0.000 description 3
- 238000005516 engineering process Methods 0.000 description 3
- 210000003527 eukaryotic cell Anatomy 0.000 description 3
- 239000012530 fluid Substances 0.000 description 3
- 201000003444 follicular lymphoma Diseases 0.000 description 3
- 210000004392 genitalia Anatomy 0.000 description 3
- 239000001963 growth medium Substances 0.000 description 3
- 235000009424 haa Nutrition 0.000 description 3
- 102000043600 human HRAS Human genes 0.000 description 3
- 239000000017 hydrogel Substances 0.000 description 3
- 230000001976 improved effect Effects 0.000 description 3
- 230000006698 induction Effects 0.000 description 3
- 238000007918 intramuscular administration Methods 0.000 description 3
- 238000007912 intraperitoneal administration Methods 0.000 description 3
- 238000002372 labelling Methods 0.000 description 3
- 108091007427 let-7g Proteins 0.000 description 3
- 238000004519 manufacturing process Methods 0.000 description 3
- 239000003550 marker Substances 0.000 description 3
- 201000001441 melanoma Diseases 0.000 description 3
- 230000004060 metabolic process Effects 0.000 description 3
- 108091049773 miR-14 stem-loop Proteins 0.000 description 3
- 239000004005 microsphere Substances 0.000 description 3
- 238000010172 mouse model Methods 0.000 description 3
- 235000013615 non-nutritive sweetener Nutrition 0.000 description 3
- 210000000496 pancreas Anatomy 0.000 description 3
- 239000008194 pharmaceutical composition Substances 0.000 description 3
- 239000000546 pharmaceutical excipient Substances 0.000 description 3
- 238000002264 polyacrylamide gel electrophoresis Methods 0.000 description 3
- 102000004196 processed proteins & peptides Human genes 0.000 description 3
- 210000002307 prostate Anatomy 0.000 description 3
- 230000005855 radiation Effects 0.000 description 3
- 230000007017 scission Effects 0.000 description 3
- 210000002966 serum Anatomy 0.000 description 3
- 238000002741 site-directed mutagenesis Methods 0.000 description 3
- 208000000649 small cell carcinoma Diseases 0.000 description 3
- 239000011780 sodium chloride Substances 0.000 description 3
- 238000007910 systemic administration Methods 0.000 description 3
- 201000003120 testicular cancer Diseases 0.000 description 3
- 230000004614 tumor growth Effects 0.000 description 3
- 238000001262 western blot Methods 0.000 description 3
- PUPZLCDOIYMWBV-UHFFFAOYSA-N (+/-)-1,3-Butanediol Chemical compound CC(O)CCO PUPZLCDOIYMWBV-UHFFFAOYSA-N 0.000 description 2
- FDKXTQMXEQVLRF-ZHACJKMWSA-N (E)-dacarbazine Chemical compound CN(C)\N=N\c1[nH]cnc1C(N)=O FDKXTQMXEQVLRF-ZHACJKMWSA-N 0.000 description 2
- 108700020469 14-3-3 Proteins 0.000 description 2
- 102000004899 14-3-3 Proteins Human genes 0.000 description 2
- 101150094625 14-3-3zeta gene Proteins 0.000 description 2
- 108010085238 Actins Proteins 0.000 description 2
- GFFGJBXGBJISGV-UHFFFAOYSA-N Adenine Chemical compound NC1=NC=NC2=C1N=CN2 GFFGJBXGBJISGV-UHFFFAOYSA-N 0.000 description 2
- 229930024421 Adenine Natural products 0.000 description 2
- IJGRMHOSHXDMSA-UHFFFAOYSA-N Atomic nitrogen Chemical compound N#N IJGRMHOSHXDMSA-UHFFFAOYSA-N 0.000 description 2
- 208000010839 B-cell chronic lymphocytic leukemia Diseases 0.000 description 2
- 235000014469 Bacillus subtilis Nutrition 0.000 description 2
- 241000894006 Bacteria Species 0.000 description 2
- 206010004146 Basal cell carcinoma Diseases 0.000 description 2
- 102100023932 Bcl-2-like protein 2 Human genes 0.000 description 2
- 101150008012 Bcl2l1 gene Proteins 0.000 description 2
- DWRXFEITVBNRMK-UHFFFAOYSA-N Beta-D-1-Arabinofuranosylthymine Natural products O=C1NC(=O)C(C)=CN1C1C(O)C(O)C(CO)O1 DWRXFEITVBNRMK-UHFFFAOYSA-N 0.000 description 2
- 108091003079 Bovine Serum Albumin Proteins 0.000 description 2
- 241000244203 Caenorhabditis elegans Species 0.000 description 2
- 101100008635 Caenorhabditis elegans daf-12 gene Proteins 0.000 description 2
- 101100343342 Caenorhabditis elegans lin-11 gene Proteins 0.000 description 2
- 101100181924 Caenorhabditis elegans lin-36 gene Proteins 0.000 description 2
- 101100181928 Caenorhabditis elegans lin-39 gene Proteins 0.000 description 2
- 101100021282 Caenorhabditis elegans lin-9 gene Proteins 0.000 description 2
- 101100402341 Caenorhabditis elegans mpk-1 gene Proteins 0.000 description 2
- 101100149252 Caenorhabditis elegans sem-5 gene Proteins 0.000 description 2
- 101100048443 Caenorhabditis elegans unc-3 gene Proteins 0.000 description 2
- 102100022533 Calcium-binding protein 39 Human genes 0.000 description 2
- 241000700199 Cavia porcellus Species 0.000 description 2
- 108090000943 Cholesterol 7-alpha-monooxygenases Proteins 0.000 description 2
- 102000004410 Cholesterol 7-alpha-monooxygenases Human genes 0.000 description 2
- 208000006332 Choriocarcinoma Diseases 0.000 description 2
- 108091035707 Consensus sequence Proteins 0.000 description 2
- 241000699800 Cricetinae Species 0.000 description 2
- 108010058546 Cyclin D1 Proteins 0.000 description 2
- 102000006311 Cyclin D1 Human genes 0.000 description 2
- 108010025464 Cyclin-Dependent Kinase 4 Proteins 0.000 description 2
- 102100036252 Cyclin-dependent kinase 4 Human genes 0.000 description 2
- 241000701022 Cytomegalovirus Species 0.000 description 2
- 108010092160 Dactinomycin Proteins 0.000 description 2
- 102100023266 Dual specificity mitogen-activated protein kinase kinase 2 Human genes 0.000 description 2
- 108050002772 E3 ubiquitin-protein ligase Mdm2 Proteins 0.000 description 2
- 102000012199 E3 ubiquitin-protein ligase Mdm2 Human genes 0.000 description 2
- 238000002965 ELISA Methods 0.000 description 2
- 108090000331 Firefly luciferases Proteins 0.000 description 2
- 206010017993 Gastrointestinal neoplasms Diseases 0.000 description 2
- 206010064571 Gene mutation Diseases 0.000 description 2
- 102100030385 Granzyme B Human genes 0.000 description 2
- 108010043121 Green Fluorescent Proteins Proteins 0.000 description 2
- 101000904691 Homo sapiens Bcl-2-like protein 2 Proteins 0.000 description 2
- 101000899411 Homo sapiens Calcium-binding protein 39 Proteins 0.000 description 2
- 101000967216 Homo sapiens Eosinophil cationic protein Proteins 0.000 description 2
- 101000998783 Homo sapiens Insulin-like 3 Proteins 0.000 description 2
- 101000593405 Homo sapiens Myb-related protein B Proteins 0.000 description 2
- 101001111338 Homo sapiens Neurofilament heavy polypeptide Proteins 0.000 description 2
- 101001074571 Homo sapiens PIN2/TERF1-interacting telomerase inhibitor 1 Proteins 0.000 description 2
- 101001073216 Homo sapiens Period circadian protein homolog 2 Proteins 0.000 description 2
- 101001073025 Homo sapiens Peroxisomal targeting signal 1 receptor Proteins 0.000 description 2
- 101000595746 Homo sapiens Phosphatidylinositol 4,5-bisphosphate 3-kinase catalytic subunit delta isoform Proteins 0.000 description 2
- 101000595751 Homo sapiens Phosphatidylinositol 4,5-bisphosphate 3-kinase catalytic subunit gamma isoform Proteins 0.000 description 2
- 101000721645 Homo sapiens Phosphatidylinositol 4-phosphate 3-kinase C2 domain-containing subunit beta Proteins 0.000 description 2
- 101000692678 Homo sapiens Phosphoinositide 3-kinase regulatory subunit 5 Proteins 0.000 description 2
- 101000585703 Homo sapiens Protein L-Myc Proteins 0.000 description 2
- 101000579425 Homo sapiens Proto-oncogene tyrosine-protein kinase receptor Ret Proteins 0.000 description 2
- 101000779418 Homo sapiens RAC-alpha serine/threonine-protein kinase Proteins 0.000 description 2
- 101000798007 Homo sapiens RAC-gamma serine/threonine-protein kinase Proteins 0.000 description 2
- 101000712530 Homo sapiens RAF proto-oncogene serine/threonine-protein kinase Proteins 0.000 description 2
- 101000771237 Homo sapiens Serine/threonine-protein kinase A-Raf Proteins 0.000 description 2
- 101000864057 Homo sapiens Serine/threonine-protein kinase SMG1 Proteins 0.000 description 2
- 101000623857 Homo sapiens Serine/threonine-protein kinase mTOR Proteins 0.000 description 2
- 101000636213 Homo sapiens Transcriptional activator Myb Proteins 0.000 description 2
- 101001026790 Homo sapiens Tyrosine-protein kinase Fes/Fps Proteins 0.000 description 2
- 241000725303 Human immunodeficiency virus Species 0.000 description 2
- VSNHCAURESNICA-UHFFFAOYSA-N Hydroxyurea Chemical compound NC(=O)NO VSNHCAURESNICA-UHFFFAOYSA-N 0.000 description 2
- 102000018251 Hypoxanthine Phosphoribosyltransferase Human genes 0.000 description 2
- 108010091358 Hypoxanthine Phosphoribosyltransferase Proteins 0.000 description 2
- 102000006496 Immunoglobulin Heavy Chains Human genes 0.000 description 2
- 108010019476 Immunoglobulin Heavy Chains Proteins 0.000 description 2
- 102100033262 Insulin-like 3 Human genes 0.000 description 2
- 241000018427 Iphisa elegans Species 0.000 description 2
- 208000007766 Kaposi sarcoma Diseases 0.000 description 2
- 208000008839 Kidney Neoplasms Diseases 0.000 description 2
- FBOZXECLQNJBKD-ZDUSSCGKSA-N L-methotrexate Chemical compound C=1N=C2N=C(N)N=C(N)C2=NC=1CN(C)C1=CC=C(C(=O)N[C@@H](CCC(O)=O)C(O)=O)C=C1 FBOZXECLQNJBKD-ZDUSSCGKSA-N 0.000 description 2
- 108060001084 Luciferase Proteins 0.000 description 2
- 239000005089 Luciferase Substances 0.000 description 2
- 108010068353 MAP Kinase Kinase 2 Proteins 0.000 description 2
- 101150039798 MYC gene Proteins 0.000 description 2
- 108700012912 MYCN Proteins 0.000 description 2
- 101150022024 MYCN gene Proteins 0.000 description 2
- 241000124008 Mammalia Species 0.000 description 2
- 108091027766 Mir-143 Proteins 0.000 description 2
- 206010068052 Mosaicism Diseases 0.000 description 2
- 241000699670 Mus sp. Species 0.000 description 2
- 102100034670 Myb-related protein B Human genes 0.000 description 2
- 101710150912 Myc protein Proteins 0.000 description 2
- 108700026495 N-Myc Proto-Oncogene Proteins 0.000 description 2
- 102000055056 N-Myc Proto-Oncogene Human genes 0.000 description 2
- 206010061309 Neoplasm progression Diseases 0.000 description 2
- 102100024007 Neurofilament heavy polypeptide Human genes 0.000 description 2
- 108020004711 Nucleic Acid Probes Proteins 0.000 description 2
- 108091005461 Nucleic proteins Proteins 0.000 description 2
- 235000019483 Peanut oil Nutrition 0.000 description 2
- 102100035787 Period circadian protein homolog 2 Human genes 0.000 description 2
- 102100036598 Peroxisomal targeting signal 1 receptor Human genes 0.000 description 2
- 102100036056 Phosphatidylinositol 4,5-bisphosphate 3-kinase catalytic subunit delta isoform Human genes 0.000 description 2
- 102100036052 Phosphatidylinositol 4,5-bisphosphate 3-kinase catalytic subunit gamma isoform Human genes 0.000 description 2
- 102100025059 Phosphatidylinositol 4-phosphate 3-kinase C2 domain-containing subunit beta Human genes 0.000 description 2
- 102100026478 Phosphoinositide 3-kinase regulatory subunit 5 Human genes 0.000 description 2
- 102000012288 Phosphopyruvate Hydratase Human genes 0.000 description 2
- 108010022181 Phosphopyruvate Hydratase Proteins 0.000 description 2
- ATUOYWHBWRKTHZ-UHFFFAOYSA-N Propane Chemical compound CCC ATUOYWHBWRKTHZ-UHFFFAOYSA-N 0.000 description 2
- 102100030128 Protein L-Myc Human genes 0.000 description 2
- 108090000412 Protein-Tyrosine Kinases Proteins 0.000 description 2
- 102000004022 Protein-Tyrosine Kinases Human genes 0.000 description 2
- 108010090931 Proto-Oncogene Proteins c-bcl-2 Proteins 0.000 description 2
- 102000013535 Proto-Oncogene Proteins c-bcl-2 Human genes 0.000 description 2
- 102100028286 Proto-oncogene tyrosine-protein kinase receptor Ret Human genes 0.000 description 2
- 102100033810 RAC-alpha serine/threonine-protein kinase Human genes 0.000 description 2
- 102100032314 RAC-gamma serine/threonine-protein kinase Human genes 0.000 description 2
- 102100033479 RAF proto-oncogene serine/threonine-protein kinase Human genes 0.000 description 2
- 241000700159 Rattus Species 0.000 description 2
- 101710100969 Receptor tyrosine-protein kinase erbB-3 Proteins 0.000 description 2
- 102100029986 Receptor tyrosine-protein kinase erbB-3 Human genes 0.000 description 2
- 208000015634 Rectal Neoplasms Diseases 0.000 description 2
- 206010038389 Renal cancer Diseases 0.000 description 2
- 241000714474 Rous sarcoma virus Species 0.000 description 2
- 201000010208 Seminoma Diseases 0.000 description 2
- 102100029437 Serine/threonine-protein kinase A-Raf Human genes 0.000 description 2
- 102100029938 Serine/threonine-protein kinase SMG1 Human genes 0.000 description 2
- 102100023085 Serine/threonine-protein kinase mTOR Human genes 0.000 description 2
- VYPSYNLAJGMNEJ-UHFFFAOYSA-N Silicium dioxide Chemical compound O=[Si]=O VYPSYNLAJGMNEJ-UHFFFAOYSA-N 0.000 description 2
- 229930182558 Sterol Natural products 0.000 description 2
- 108091036066 Three prime untranslated region Proteins 0.000 description 2
- 102100022011 Transcription intermediary factor 1-alpha Human genes 0.000 description 2
- 102100030780 Transcriptional activator Myb Human genes 0.000 description 2
- 108700019146 Transgenes Proteins 0.000 description 2
- 108010040002 Tumor Suppressor Proteins Proteins 0.000 description 2
- 102000001742 Tumor Suppressor Proteins Human genes 0.000 description 2
- 102100037333 Tyrosine-protein kinase Fes/Fps Human genes 0.000 description 2
- 208000008383 Wilms tumor Diseases 0.000 description 2
- 239000002253 acid Substances 0.000 description 2
- RJURFGZVJUQBHK-IIXSONLDSA-N actinomycin D Chemical compound C[C@H]1OC(=O)[C@H](C(C)C)N(C)C(=O)CN(C)C(=O)[C@@H]2CCCN2C(=O)[C@@H](C(C)C)NC(=O)[C@H]1NC(=O)C1=C(N)C(=O)C(C)=C2OC(C(C)=CC=C3C(=O)N[C@@H]4C(=O)N[C@@H](C(N5CCC[C@H]5C(=O)N(C)CC(=O)N(C)[C@@H](C(C)C)C(=O)O[C@@H]4C)=O)C(C)C)=C3N=C21 RJURFGZVJUQBHK-IIXSONLDSA-N 0.000 description 2
- 238000007792 addition Methods 0.000 description 2
- 229960000643 adenine Drugs 0.000 description 2
- 208000009956 adenocarcinoma Diseases 0.000 description 2
- 230000002411 adverse Effects 0.000 description 2
- 230000004075 alteration Effects 0.000 description 2
- 150000001413 amino acids Chemical class 0.000 description 2
- 238000010171 animal model Methods 0.000 description 2
- 239000004599 antimicrobial Substances 0.000 description 2
- 239000002246 antineoplastic agent Substances 0.000 description 2
- 229940041181 antineoplastic drug Drugs 0.000 description 2
- 239000007864 aqueous solution Substances 0.000 description 2
- 239000007900 aqueous suspension Substances 0.000 description 2
- 210000003719 b-lymphocyte Anatomy 0.000 description 2
- OGBUMNBNEWYMNJ-UHFFFAOYSA-N batilol Chemical class CCCCCCCCCCCCCCCCCCOCC(O)CO OGBUMNBNEWYMNJ-UHFFFAOYSA-N 0.000 description 2
- 108700000711 bcl-X Proteins 0.000 description 2
- 102000055104 bcl-X Human genes 0.000 description 2
- WQZGKKKJIJFFOK-VFUOTHLCSA-N beta-D-glucose Chemical compound OC[C@H]1O[C@@H](O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-VFUOTHLCSA-N 0.000 description 2
- IQFYYKKMVGJFEH-UHFFFAOYSA-N beta-L-thymidine Natural products O=C1NC(=O)C(C)=CN1C1OC(CO)C(O)C1 IQFYYKKMVGJFEH-UHFFFAOYSA-N 0.000 description 2
- 239000011230 binding agent Substances 0.000 description 2
- 210000004556 brain Anatomy 0.000 description 2
- 239000000872 buffer Substances 0.000 description 2
- 239000000969 carrier Substances 0.000 description 2
- 230000015556 catabolic process Effects 0.000 description 2
- 230000030833 cell death Effects 0.000 description 2
- 239000002738 chelating agent Substances 0.000 description 2
- 239000003153 chemical reaction reagent Substances 0.000 description 2
- 210000000349 chromosome Anatomy 0.000 description 2
- 208000032852 chronic lymphocytic leukemia Diseases 0.000 description 2
- 210000000448 cultured tumor cell Anatomy 0.000 description 2
- 229940104302 cytosine Drugs 0.000 description 2
- 229960000640 dactinomycin Drugs 0.000 description 2
- 230000003247 decreasing effect Effects 0.000 description 2
- 230000007547 defect Effects 0.000 description 2
- 238000006731 degradation reaction Methods 0.000 description 2
- 238000010586 diagram Methods 0.000 description 2
- 235000014113 dietary fatty acids Nutrition 0.000 description 2
- 238000012377 drug delivery Methods 0.000 description 2
- 238000004520 electroporation Methods 0.000 description 2
- 210000002257 embryonic structure Anatomy 0.000 description 2
- 238000005538 encapsulation Methods 0.000 description 2
- 102000052116 epidermal growth factor receptor activity proteins Human genes 0.000 description 2
- 108700015053 epidermal growth factor receptor activity proteins Proteins 0.000 description 2
- 210000002615 epidermis Anatomy 0.000 description 2
- 239000003925 fat Substances 0.000 description 2
- 235000019197 fats Nutrition 0.000 description 2
- 229930195729 fatty acid Natural products 0.000 description 2
- 239000000194 fatty acid Substances 0.000 description 2
- 150000004665 fatty acids Chemical class 0.000 description 2
- 239000012894 fetal calf serum Substances 0.000 description 2
- DLKYYJFLRUUGHJ-SSJCJZGYSA-A fomivirsen sodium Chemical compound [Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].[Na+].O=C1NC(=O)C(C)=CN1[C@@H]1O[C@H](COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(N=C(N)C=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(N=C(N)C=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(N=C(N)C=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(N=C(N)C=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C3=C(C(NC(N)=N3)=O)N=C2)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C(NC(=O)C(C)=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C3=C(C(NC(N)=N3)=O)N=C2)COP([S-])(=O)O[C@@H]2[C@H](O[C@H](C2)N2C(N=C(N)C=C2)=O)COP([O-])(=S)O[C@@H]2[C@H](O[C@H](C2)N2C3=C(C(NC(N)=N3)=O)N=C2)CO)[C@@H](OP([O-])(=S)OC[C@@H]2[C@H](C[C@@H](O2)N2C3=C(C(NC(N)=N3)=O)N=C2)OP([O-])(=S)OC[C@@H]2[C@H](C[C@@H](O2)N2C(N=C(N)C=C2)=O)OP([O-])(=S)OC[C@@H]2[C@H](C[C@@H](O2)N2C3=C(C(NC(N)=N3)=O)N=C2)O)C1 DLKYYJFLRUUGHJ-SSJCJZGYSA-A 0.000 description 2
- 208000005017 glioblastoma Diseases 0.000 description 2
- 239000008103 glucose Substances 0.000 description 2
- 201000010536 head and neck cancer Diseases 0.000 description 2
- 208000014829 head and neck neoplasm Diseases 0.000 description 2
- 230000036541 health Effects 0.000 description 2
- 208000019691 hematopoietic and lymphoid cell neoplasm Diseases 0.000 description 2
- 229940088597 hormone Drugs 0.000 description 2
- 239000005556 hormone Substances 0.000 description 2
- 102000053563 human MYC Human genes 0.000 description 2
- 229960001330 hydroxycarbamide Drugs 0.000 description 2
- FDGQSTZJBFJUBT-UHFFFAOYSA-N hypoxanthine Chemical compound O=C1NC=NC2=C1NC=N2 FDGQSTZJBFJUBT-UHFFFAOYSA-N 0.000 description 2
- 238000010874 in vitro model Methods 0.000 description 2
- 238000011065 in-situ storage Methods 0.000 description 2
- 238000010348 incorporation Methods 0.000 description 2
- 208000015181 infectious disease Diseases 0.000 description 2
- 201000010982 kidney cancer Diseases 0.000 description 2
- 108091047626 let-7a-2 stem-loop Proteins 0.000 description 2
- 230000000670 limiting effect Effects 0.000 description 2
- 101150084277 lin-45 gene Proteins 0.000 description 2
- 230000004777 loss-of-function mutation Effects 0.000 description 2
- 238000003670 luciferase enzyme activity assay Methods 0.000 description 2
- 206010061289 metastatic neoplasm Diseases 0.000 description 2
- 229960000485 methotrexate Drugs 0.000 description 2
- 108091044988 miR-125a stem-loop Proteins 0.000 description 2
- 108091049513 miR-125a-1 stem-loop Proteins 0.000 description 2
- 108091040046 miR-125a-2 stem-loop Proteins 0.000 description 2
- 108091091360 miR-125b stem-loop Proteins 0.000 description 2
- 108091050874 miR-19a stem-loop Proteins 0.000 description 2
- 108091086850 miR-19a-1 stem-loop Proteins 0.000 description 2
- 108091088468 miR-19a-2 stem-loop Proteins 0.000 description 2
- 108091039884 miR-241 stem-loop Proteins 0.000 description 2
- 108091073853 miR-241-1 stem-loop Proteins 0.000 description 2
- 108091057178 miR-241-2 stem-loop Proteins 0.000 description 2
- 108091007426 microRNA precursor Proteins 0.000 description 2
- 239000011859 microparticle Substances 0.000 description 2
- 238000002156 mixing Methods 0.000 description 2
- YOHYSYJDKVYCJI-UHFFFAOYSA-N n-[3-[[6-[3-(trifluoromethyl)anilino]pyrimidin-4-yl]amino]phenyl]cyclopropanecarboxamide Chemical compound FC(F)(F)C1=CC=CC(NC=2N=CN=C(NC=3C=C(NC(=O)C4CC4)C=CC=3)C=2)=C1 YOHYSYJDKVYCJI-UHFFFAOYSA-N 0.000 description 2
- 201000008026 nephroblastoma Diseases 0.000 description 2
- 239000002853 nucleic acid probe Substances 0.000 description 2
- 210000004940 nucleus Anatomy 0.000 description 2
- 229940046166 oligodeoxynucleotide Drugs 0.000 description 2
- 108091008819 oncoproteins Proteins 0.000 description 2
- 230000005305 organ development Effects 0.000 description 2
- 150000007530 organic bases Chemical class 0.000 description 2
- 238000004806 packaging method and process Methods 0.000 description 2
- 239000002245 particle Substances 0.000 description 2
- 239000000312 peanut oil Substances 0.000 description 2
- 239000008188 pellet Substances 0.000 description 2
- NBIIXXVUZAFLBC-UHFFFAOYSA-K phosphate Chemical compound [O-]P([O-])([O-])=O NBIIXXVUZAFLBC-UHFFFAOYSA-K 0.000 description 2
- 229920002401 polyacrylamide Polymers 0.000 description 2
- 229920001184 polypeptide Polymers 0.000 description 2
- 239000000843 powder Substances 0.000 description 2
- 238000001556 precipitation Methods 0.000 description 2
- 230000002028 premature Effects 0.000 description 2
- 210000001236 prokaryotic cell Anatomy 0.000 description 2
- 239000003380 propellant Substances 0.000 description 2
- 150000003212 purines Chemical class 0.000 description 2
- 150000003230 pyrimidines Chemical class 0.000 description 2
- 238000003127 radioimmunoassay Methods 0.000 description 2
- 206010038038 rectal cancer Diseases 0.000 description 2
- 201000001275 rectum cancer Diseases 0.000 description 2
- 230000009467 reduction Effects 0.000 description 2
- 238000011160 research Methods 0.000 description 2
- 239000011347 resin Substances 0.000 description 2
- 229920005989 resin Polymers 0.000 description 2
- 230000001177 retroviral effect Effects 0.000 description 2
- 230000002441 reversible effect Effects 0.000 description 2
- 239000007921 spray Substances 0.000 description 2
- 239000003381 stabilizer Substances 0.000 description 2
- 150000003431 steroids Chemical class 0.000 description 2
- 150000003432 sterols Chemical class 0.000 description 2
- 235000003702 sterols Nutrition 0.000 description 2
- 235000000346 sugar Nutrition 0.000 description 2
- 230000002459 sustained effect Effects 0.000 description 2
- 230000002194 synthesizing effect Effects 0.000 description 2
- 238000012360 testing method Methods 0.000 description 2
- 238000002560 therapeutic procedure Methods 0.000 description 2
- 239000002562 thickening agent Substances 0.000 description 2
- 238000004809 thin layer chromatography Methods 0.000 description 2
- 229940104230 thymidine Drugs 0.000 description 2
- WYWHKKSPHMUBEB-UHFFFAOYSA-N tioguanine Chemical compound N1C(N)=NC(=S)C2=C1N=CN2 WYWHKKSPHMUBEB-UHFFFAOYSA-N 0.000 description 2
- 230000000699 topical effect Effects 0.000 description 2
- 108010071511 transcriptional intermediary factor 1 Proteins 0.000 description 2
- 230000007704 transition Effects 0.000 description 2
- 230000005945 translocation Effects 0.000 description 2
- 230000005751 tumor progression Effects 0.000 description 2
- 241000701161 unidentified adenovirus Species 0.000 description 2
- 230000003827 upregulation Effects 0.000 description 2
- 229940035893 uracil Drugs 0.000 description 2
- 230000002485 urinary effect Effects 0.000 description 2
- 239000013603 viral vector Substances 0.000 description 2
- 102000009310 vitamin D receptors Human genes 0.000 description 2
- 108050000156 vitamin D receptors Proteins 0.000 description 2
- DIGQNXIGRZPYDK-WKSCXVIASA-N (2R)-6-amino-2-[[2-[[(2S)-2-[[2-[[(2R)-2-[[(2S)-2-[[(2R,3S)-2-[[2-[[(2S)-2-[[2-[[(2S)-2-[[(2S)-2-[[(2R)-2-[[(2S,3S)-2-[[(2R)-2-[[(2S)-2-[[(2S)-2-[[(2S)-2-[[2-[[(2S)-2-[[(2R)-2-[[2-[[2-[[2-[(2-amino-1-hydroxyethylidene)amino]-3-carboxy-1-hydroxypropylidene]amino]-1-hydroxy-3-sulfanylpropylidene]amino]-1-hydroxyethylidene]amino]-1-hydroxy-3-sulfanylpropylidene]amino]-1,3-dihydroxypropylidene]amino]-1-hydroxyethylidene]amino]-1-hydroxypropylidene]amino]-1,3-dihydroxypropylidene]amino]-1,3-dihydroxypropylidene]amino]-1-hydroxy-3-sulfanylpropylidene]amino]-1,3-dihydroxybutylidene]amino]-1-hydroxy-3-sulfanylpropylidene]amino]-1-hydroxypropylidene]amino]-1,3-dihydroxypropylidene]amino]-1-hydroxyethylidene]amino]-1,5-dihydroxy-5-iminopentylidene]amino]-1-hydroxy-3-sulfanylpropylidene]amino]-1,3-dihydroxybutylidene]amino]-1-hydroxy-3-sulfanylpropylidene]amino]-1,3-dihydroxypropylidene]amino]-1-hydroxyethylidene]amino]-1-hydroxy-3-sulfanylpropylidene]amino]-1-hydroxyethylidene]amino]hexanoic acid Chemical compound C[C@@H]([C@@H](C(=N[C@@H](CS)C(=N[C@@H](C)C(=N[C@@H](CO)C(=NCC(=N[C@@H](CCC(=N)O)C(=NC(CS)C(=N[C@H]([C@H](C)O)C(=N[C@H](CS)C(=N[C@H](CO)C(=NCC(=N[C@H](CS)C(=NCC(=N[C@H](CCCCN)C(=O)O)O)O)O)O)O)O)O)O)O)O)O)O)O)N=C([C@H](CS)N=C([C@H](CO)N=C([C@H](CO)N=C([C@H](C)N=C(CN=C([C@H](CO)N=C([C@H](CS)N=C(CN=C(C(CS)N=C(C(CC(=O)O)N=C(CN)O)O)O)O)O)O)O)O)O)O)O)O DIGQNXIGRZPYDK-WKSCXVIASA-N 0.000 description 1
- DEQANNDTNATYII-OULOTJBUSA-N (4r,7s,10s,13r,16s,19r)-10-(4-aminobutyl)-19-[[(2r)-2-amino-3-phenylpropanoyl]amino]-16-benzyl-n-[(2r,3r)-1,3-dihydroxybutan-2-yl]-7-[(1r)-1-hydroxyethyl]-13-(1h-indol-3-ylmethyl)-6,9,12,15,18-pentaoxo-1,2-dithia-5,8,11,14,17-pentazacycloicosane-4-carboxa Chemical compound C([C@@H](N)C(=O)N[C@H]1CSSC[C@H](NC(=O)[C@H]([C@@H](C)O)NC(=O)[C@H](CCCCN)NC(=O)[C@@H](CC=2C3=CC=CC=C3NC=2)NC(=O)[C@H](CC=2C=CC=CC=2)NC1=O)C(=O)N[C@H](CO)[C@H](O)C)C1=CC=CC=C1 DEQANNDTNATYII-OULOTJBUSA-N 0.000 description 1
- FPVKHBSQESCIEP-UHFFFAOYSA-N (8S)-3-(2-deoxy-beta-D-erythro-pentofuranosyl)-3,6,7,8-tetrahydroimidazo[4,5-d][1,3]diazepin-8-ol Natural products C1C(O)C(CO)OC1N1C(NC=NCC2O)=C2N=C1 FPVKHBSQESCIEP-UHFFFAOYSA-N 0.000 description 1
- WRIDQFICGBMAFQ-UHFFFAOYSA-N (E)-8-Octadecenoic acid Natural products CCCCCCCCCC=CCCCCCCC(O)=O WRIDQFICGBMAFQ-UHFFFAOYSA-N 0.000 description 1
- 102000040650 (ribonucleotides)n+m Human genes 0.000 description 1
- HBOMLICNUCNMMY-KJFJCRTCSA-N 1-[(4s,5s)-4-azido-5-(hydroxymethyl)oxolan-2-yl]-5-methylpyrimidine-2,4-dione Chemical compound O=C1NC(=O)C(C)=CN1C1O[C@H](CO)[C@@H](N=[N+]=[N-])C1 HBOMLICNUCNMMY-KJFJCRTCSA-N 0.000 description 1
- DURPTKYDGMDSBL-UHFFFAOYSA-N 1-butoxybutane Chemical compound CCCCOCCCC DURPTKYDGMDSBL-UHFFFAOYSA-N 0.000 description 1
- KKVYYGGCHJGEFJ-UHFFFAOYSA-N 1-n-(4-chlorophenyl)-6-methyl-5-n-[3-(7h-purin-6-yl)pyridin-2-yl]isoquinoline-1,5-diamine Chemical compound N=1C=CC2=C(NC=3C(=CC=CN=3)C=3C=4N=CNC=4N=CN=3)C(C)=CC=C2C=1NC1=CC=C(Cl)C=C1 KKVYYGGCHJGEFJ-UHFFFAOYSA-N 0.000 description 1
- GZCWLCBFPRFLKL-UHFFFAOYSA-N 1-prop-2-ynoxypropan-2-ol Chemical compound CC(O)COCC#C GZCWLCBFPRFLKL-UHFFFAOYSA-N 0.000 description 1
- MWBWWFOAEOYUST-UHFFFAOYSA-N 2-aminopurine Chemical compound NC1=NC=C2N=CNC2=N1 MWBWWFOAEOYUST-UHFFFAOYSA-N 0.000 description 1
- ASJSAQIRZKANQN-CRCLSJGQSA-N 2-deoxy-D-ribose Chemical compound OC[C@@H](O)[C@@H](O)CC=O ASJSAQIRZKANQN-CRCLSJGQSA-N 0.000 description 1
- BFSVOASYOCHEOV-UHFFFAOYSA-N 2-diethylaminoethanol Chemical compound CCN(CC)CCO BFSVOASYOCHEOV-UHFFFAOYSA-N 0.000 description 1
- LQJBNNIYVWPHFW-UHFFFAOYSA-N 20:1omega9c fatty acid Natural products CCCCCCCCCCC=CCCCCCCCC(O)=O LQJBNNIYVWPHFW-UHFFFAOYSA-N 0.000 description 1
- 108020005065 3' Flanking Region Proteins 0.000 description 1
- KCURWTAZOZXKSJ-JBMRGDGGSA-N 4-amino-1-[(2r,3s,4s,5r)-3,4-dihydroxy-5-(hydroxymethyl)oxolan-2-yl]pyrimidin-2-one;hydron;chloride Chemical compound Cl.O=C1N=C(N)C=CN1[C@H]1[C@@H](O)[C@H](O)[C@@H](CO)O1 KCURWTAZOZXKSJ-JBMRGDGGSA-N 0.000 description 1
- 108020005029 5' Flanking Region Proteins 0.000 description 1
- 101710169336 5'-deoxyadenosine deaminase Proteins 0.000 description 1
- NMUSYJAQQFHJEW-KVTDHHQDSA-N 5-azacytidine Chemical compound O=C1N=C(N)N=CN1[C@H]1[C@H](O)[C@H](O)[C@@H](CO)O1 NMUSYJAQQFHJEW-KVTDHHQDSA-N 0.000 description 1
- LRSASMSXMSNRBT-UHFFFAOYSA-N 5-methylcytosine Chemical compound CC1=CNC(=O)N=C1N LRSASMSXMSNRBT-UHFFFAOYSA-N 0.000 description 1
- 108020005075 5S Ribosomal RNA Proteins 0.000 description 1
- RYYIULNRIVUMTQ-UHFFFAOYSA-N 6-chloroguanine Chemical compound NC1=NC(Cl)=C2N=CNC2=N1 RYYIULNRIVUMTQ-UHFFFAOYSA-N 0.000 description 1
- KABRXLINDSPGDF-UHFFFAOYSA-N 7-bromoisoquinoline Chemical compound C1=CN=CC2=CC(Br)=CC=C21 KABRXLINDSPGDF-UHFFFAOYSA-N 0.000 description 1
- QSBYPNXLFMSGKH-UHFFFAOYSA-N 9-Heptadecensaeure Natural products CCCCCCCC=CCCCCCCCC(O)=O QSBYPNXLFMSGKH-UHFFFAOYSA-N 0.000 description 1
- MSSXOMSJDRHRMC-UHFFFAOYSA-N 9H-purine-2,6-diamine Chemical compound NC1=NC(N)=C2NC=NC2=N1 MSSXOMSJDRHRMC-UHFFFAOYSA-N 0.000 description 1
- 208000030507 AIDS Diseases 0.000 description 1
- DLFVBJFMPXGRIB-UHFFFAOYSA-N Acetamide Chemical compound CC(N)=O DLFVBJFMPXGRIB-UHFFFAOYSA-N 0.000 description 1
- 108010051457 Acid Phosphatase Proteins 0.000 description 1
- 102000013563 Acid Phosphatase Human genes 0.000 description 1
- 102100022900 Actin, cytoplasmic 1 Human genes 0.000 description 1
- 241000251468 Actinopterygii Species 0.000 description 1
- 102000007469 Actins Human genes 0.000 description 1
- 206010000830 Acute leukaemia Diseases 0.000 description 1
- 208000024893 Acute lymphoblastic leukemia Diseases 0.000 description 1
- 208000014697 Acute lymphocytic leukaemia Diseases 0.000 description 1
- 208000036762 Acute promyelocytic leukaemia Diseases 0.000 description 1
- 102000055025 Adenosine deaminases Human genes 0.000 description 1
- 208000009746 Adult T-Cell Leukemia-Lymphoma Diseases 0.000 description 1
- 206010001413 Adult T-cell lymphoma/leukaemia Diseases 0.000 description 1
- 229920001817 Agar Polymers 0.000 description 1
- 229920000936 Agarose Polymers 0.000 description 1
- 108020004774 Alkaline Phosphatase Proteins 0.000 description 1
- 102000002260 Alkaline Phosphatase Human genes 0.000 description 1
- 239000004382 Amylase Substances 0.000 description 1
- 102000013142 Amylases Human genes 0.000 description 1
- 108010065511 Amylases Proteins 0.000 description 1
- 102000008682 Argonaute Proteins Human genes 0.000 description 1
- 108010088141 Argonaute Proteins Proteins 0.000 description 1
- 239000000592 Artificial Cell Substances 0.000 description 1
- 102000015790 Asparaginase Human genes 0.000 description 1
- 108010024976 Asparaginase Proteins 0.000 description 1
- 244000063299 Bacillus subtilis Species 0.000 description 1
- 208000005440 Basal Cell Neoplasms Diseases 0.000 description 1
- 102100026189 Beta-galactosidase Human genes 0.000 description 1
- 108010006654 Bleomycin Proteins 0.000 description 1
- 206010005949 Bone cancer Diseases 0.000 description 1
- 208000018084 Bone neoplasm Diseases 0.000 description 1
- 208000013165 Bowen disease Diseases 0.000 description 1
- 208000019337 Bowen disease of the skin Diseases 0.000 description 1
- 238000007809 Boyden Chamber assay Methods 0.000 description 1
- COVZYZSDYWQREU-UHFFFAOYSA-N Busulfan Chemical compound CS(=O)(=O)OCCCCOS(C)(=O)=O COVZYZSDYWQREU-UHFFFAOYSA-N 0.000 description 1
- 108010074051 C-Reactive Protein Proteins 0.000 description 1
- 102100032752 C-reactive protein Human genes 0.000 description 1
- FVLVBPDQNARYJU-XAHDHGMMSA-N C[C@H]1CCC(CC1)NC(=O)N(CCCl)N=O Chemical compound C[C@H]1CCC(CC1)NC(=O)N(CCCl)N=O FVLVBPDQNARYJU-XAHDHGMMSA-N 0.000 description 1
- 101100275299 Caenorhabditis elegans col-10 gene Proteins 0.000 description 1
- 101100459320 Caenorhabditis elegans myo-2 gene Proteins 0.000 description 1
- 241000222120 Candida <Saccharomycetales> Species 0.000 description 1
- KXDHJXZQYSOELW-UHFFFAOYSA-M Carbamate Chemical compound NC([O-])=O KXDHJXZQYSOELW-UHFFFAOYSA-M 0.000 description 1
- 201000009030 Carcinoma Diseases 0.000 description 1
- 208000009458 Carcinoma in Situ Diseases 0.000 description 1
- DLGOEMSEDOSKAD-UHFFFAOYSA-N Carmustine Chemical compound ClCCNC(=O)N(N=O)CCCl DLGOEMSEDOSKAD-UHFFFAOYSA-N 0.000 description 1
- 108010076667 Caspases Proteins 0.000 description 1
- 102000011727 Caspases Human genes 0.000 description 1
- 108010001857 Cell Surface Receptors Proteins 0.000 description 1
- 102000000844 Cell Surface Receptors Human genes 0.000 description 1
- 241000282693 Cercopithecidae Species 0.000 description 1
- GXGJIOMUZAGVEH-UHFFFAOYSA-N Chamazulene Chemical group CCC1=CC=C(C)C2=CC=C(C)C2=C1 GXGJIOMUZAGVEH-UHFFFAOYSA-N 0.000 description 1
- 102100035371 Chymotrypsin-like elastase family member 1 Human genes 0.000 description 1
- 101710138848 Chymotrypsin-like elastase family member 1 Proteins 0.000 description 1
- 108020004705 Codon Proteins 0.000 description 1
- 102000012422 Collagen Type I Human genes 0.000 description 1
- 108010022452 Collagen Type I Proteins 0.000 description 1
- 102000004420 Creatine Kinase Human genes 0.000 description 1
- 108010042126 Creatine kinase Proteins 0.000 description 1
- 241000699802 Cricetulus griseus Species 0.000 description 1
- 239000004971 Cross linker Substances 0.000 description 1
- 102100033270 Cyclin-dependent kinase inhibitor 1 Human genes 0.000 description 1
- CMSMOCZEIVJLDB-UHFFFAOYSA-N Cyclophosphamide Chemical compound ClCCN(CCCl)P1(=O)NCCCO1 CMSMOCZEIVJLDB-UHFFFAOYSA-N 0.000 description 1
- 201000003883 Cystic fibrosis Diseases 0.000 description 1
- UHDGCWIWMRVCDJ-CCXZUQQUSA-N Cytarabine Chemical compound O=C1N=C(N)C=CN1[C@H]1[C@@H](O)[C@H](O)[C@@H](CO)O1 UHDGCWIWMRVCDJ-CCXZUQQUSA-N 0.000 description 1
- HMFHBZSHGGEWLO-SOOFDHNKSA-N D-ribofuranose Chemical compound OC[C@H]1OC(O)[C@H](O)[C@@H]1O HMFHBZSHGGEWLO-SOOFDHNKSA-N 0.000 description 1
- 102000053602 DNA Human genes 0.000 description 1
- 230000005778 DNA damage Effects 0.000 description 1
- 231100000277 DNA damage Toxicity 0.000 description 1
- 241000252212 Danio rerio Species 0.000 description 1
- 101100467578 Danio rerio nras gene Proteins 0.000 description 1
- GUGHGUXZJWAIAS-QQYBVWGSSA-N Daunorubicin hydrochloride Chemical compound Cl.O([C@H]1C[C@@](O)(CC=2C(O)=C3C(=O)C=4C=CC=C(C=4C(=O)C3=C(O)C=21)OC)C(C)=O)[C@H]1C[C@H](N)[C@H](O)[C@H](C)O1 GUGHGUXZJWAIAS-QQYBVWGSSA-N 0.000 description 1
- 241000702421 Dependoparvovirus Species 0.000 description 1
- 229920002307 Dextran Polymers 0.000 description 1
- 239000004338 Dichlorodifluoromethane Substances 0.000 description 1
- SHIBSTMRCDJXLN-UHFFFAOYSA-N Digoxigenin Natural products C1CC(C2C(C3(C)CCC(O)CC3CC2)CC2O)(O)C2(C)C1C1=CC(=O)OC1 SHIBSTMRCDJXLN-UHFFFAOYSA-N 0.000 description 1
- 241000255925 Diptera Species 0.000 description 1
- 206010061818 Disease progression Diseases 0.000 description 1
- AOJJSUZBOXZQNB-TZSSRYMLSA-N Doxorubicin Chemical compound O([C@H]1C[C@@](O)(CC=2C(O)=C3C(=O)C=4C=CC=C(C=4C(=O)C3=C(O)C=21)OC)C(=O)CO)[C@H]1C[C@H](N)[C@H](O)[C@H](C)O1 AOJJSUZBOXZQNB-TZSSRYMLSA-N 0.000 description 1
- LVGKNOAMLMIIKO-UHFFFAOYSA-N Elaidinsaeure-aethylester Natural products CCCCCCCCC=CCCCCCCCC(=O)OCC LVGKNOAMLMIIKO-UHFFFAOYSA-N 0.000 description 1
- 101710099240 Elastase-1 Proteins 0.000 description 1
- 102000004533 Endonucleases Human genes 0.000 description 1
- 108010042407 Endonucleases Proteins 0.000 description 1
- LFQSCWFLJHTTHZ-UHFFFAOYSA-N Ethanol Chemical compound CCO LFQSCWFLJHTTHZ-UHFFFAOYSA-N 0.000 description 1
- 201000008808 Fibrosarcoma Diseases 0.000 description 1
- GHASVSINZRGABV-UHFFFAOYSA-N Fluorouracil Chemical compound FC1=CNC(=O)NC1=O GHASVSINZRGABV-UHFFFAOYSA-N 0.000 description 1
- 102000001390 Fructose-Bisphosphate Aldolase Human genes 0.000 description 1
- 108010068561 Fructose-Bisphosphate Aldolase Proteins 0.000 description 1
- 102100028652 Gamma-enolase Human genes 0.000 description 1
- 108700028146 Genetic Enhancer Elements Proteins 0.000 description 1
- 208000034826 Genetic Predisposition to Disease Diseases 0.000 description 1
- 208000032320 Germ cell tumor of testis Diseases 0.000 description 1
- 101710103262 Glandular kallikrein Proteins 0.000 description 1
- 208000032612 Glial tumor Diseases 0.000 description 1
- 201000010915 Glioblastoma multiforme Diseases 0.000 description 1
- 206010018338 Glioma Diseases 0.000 description 1
- 102000006395 Globulins Human genes 0.000 description 1
- 108010044091 Globulins Proteins 0.000 description 1
- 102100021186 Granulysin Human genes 0.000 description 1
- 108060005986 Granzyme Proteins 0.000 description 1
- 102000004144 Green Fluorescent Proteins Human genes 0.000 description 1
- 208000017604 Hodgkin disease Diseases 0.000 description 1
- 208000010747 Hodgkins lymphoma Diseases 0.000 description 1
- 101000942118 Homo sapiens C-reactive protein Proteins 0.000 description 1
- 101100273713 Homo sapiens CD2 gene Proteins 0.000 description 1
- 101001040751 Homo sapiens Granulysin Proteins 0.000 description 1
- 101001009603 Homo sapiens Granzyme B Proteins 0.000 description 1
- 101000840558 Homo sapiens Hexokinase-4 Proteins 0.000 description 1
- 101000854886 Homo sapiens Immunoglobulin iota chain Proteins 0.000 description 1
- 101000904173 Homo sapiens Progonadoliberin-1 Proteins 0.000 description 1
- 101000780650 Homo sapiens Protein argonaute-1 Proteins 0.000 description 1
- 101000690503 Homo sapiens Protein argonaute-3 Proteins 0.000 description 1
- 101000690460 Homo sapiens Protein argonaute-4 Proteins 0.000 description 1
- 101001012157 Homo sapiens Receptor tyrosine-protein kinase erbB-2 Proteins 0.000 description 1
- 101000766306 Homo sapiens Serotransferrin Proteins 0.000 description 1
- 241000701044 Human gammaherpesvirus 4 Species 0.000 description 1
- 102000004286 Hydroxymethylglutaryl CoA Reductases Human genes 0.000 description 1
- 108090000895 Hydroxymethylglutaryl CoA Reductases Proteins 0.000 description 1
- UGQMRVRMYYASKQ-UHFFFAOYSA-N Hypoxanthine nucleoside Natural products OC1C(O)C(CO)OC1N1C(NC=NC2=O)=C2N=C1 UGQMRVRMYYASKQ-UHFFFAOYSA-N 0.000 description 1
- 108091093097 IMAGE cDNA clone Proteins 0.000 description 1
- DGAQECJNVWCQMB-PUAWFVPOSA-M Ilexoside XXIX Chemical compound C[C@@H]1CC[C@@]2(CC[C@@]3(C(=CC[C@H]4[C@]3(CC[C@@H]5[C@@]4(CC[C@@H](C5(C)C)OS(=O)(=O)[O-])C)C)[C@@H]2[C@]1(C)O)C)C(=O)O[C@H]6[C@@H]([C@H]([C@@H]([C@H](O6)CO)O)O)O.[Na+] DGAQECJNVWCQMB-PUAWFVPOSA-M 0.000 description 1
- 102100020744 Immunoglobulin iota chain Human genes 0.000 description 1
- UGQMRVRMYYASKQ-KQYNXXCUSA-N Inosine Chemical compound O[C@@H]1[C@H](O)[C@@H](CO)O[C@H]1N1C2=NC=NC(O)=C2N=C1 UGQMRVRMYYASKQ-KQYNXXCUSA-N 0.000 description 1
- 229930010555 Inosine Natural products 0.000 description 1
- 102000014150 Interferons Human genes 0.000 description 1
- 108010050904 Interferons Proteins 0.000 description 1
- 102100020873 Interleukin-2 Human genes 0.000 description 1
- 108010002350 Interleukin-2 Proteins 0.000 description 1
- 241000235649 Kluyveromyces Species 0.000 description 1
- 101150105104 Kras gene Proteins 0.000 description 1
- 206010023825 Laryngeal cancer Diseases 0.000 description 1
- 208000018142 Leiomyosarcoma Diseases 0.000 description 1
- 108010000817 Leuprolide Proteins 0.000 description 1
- 108090001030 Lipoproteins Proteins 0.000 description 1
- 102000004895 Lipoproteins Human genes 0.000 description 1
- GQYIWUVLTXOXAJ-UHFFFAOYSA-N Lomustine Chemical compound ClCCN(N=O)C(=O)NC1CCCCC1 GQYIWUVLTXOXAJ-UHFFFAOYSA-N 0.000 description 1
- 208000007433 Lymphatic Metastasis Diseases 0.000 description 1
- 206010052178 Lymphocytic lymphoma Diseases 0.000 description 1
- 208000000172 Medulloblastoma Diseases 0.000 description 1
- XOGTZOOQQBDUSI-UHFFFAOYSA-M Mesna Chemical compound [Na+].[O-]S(=O)(=O)CCS XOGTZOOQQBDUSI-UHFFFAOYSA-M 0.000 description 1
- 102000003792 Metallothionein Human genes 0.000 description 1
- 108090000157 Metallothionein Proteins 0.000 description 1
- 108091033773 MiR-155 Proteins 0.000 description 1
- 108091028684 Mir-145 Proteins 0.000 description 1
- 229930192392 Mitomycin Natural products 0.000 description 1
- 241000713869 Moloney murine leukemia virus Species 0.000 description 1
- 241000713862 Moloney murine sarcoma virus Species 0.000 description 1
- 241000713333 Mouse mammary tumor virus Species 0.000 description 1
- 241001529936 Murinae Species 0.000 description 1
- 241000699660 Mus musculus Species 0.000 description 1
- 101100381978 Mus musculus Braf gene Proteins 0.000 description 1
- 108091057508 Myc family Proteins 0.000 description 1
- NWIBSHFKIJFRCO-WUDYKRTCSA-N Mytomycin Chemical compound C1N2C(C(C(C)=C(N)C3=O)=O)=C3[C@@H](COC(N)=O)[C@@]2(OC)[C@@H]2[C@H]1N2 NWIBSHFKIJFRCO-WUDYKRTCSA-N 0.000 description 1
- 208000034176 Neoplasms, Germ Cell and Embryonal Diseases 0.000 description 1
- 244000061176 Nicotiana tabacum Species 0.000 description 1
- 235000002637 Nicotiana tabacum Nutrition 0.000 description 1
- 108010070047 Notch Receptors Proteins 0.000 description 1
- 102000005650 Notch Receptors Human genes 0.000 description 1
- 239000004677 Nylon Substances 0.000 description 1
- 108010016076 Octreotide Proteins 0.000 description 1
- 239000005642 Oleic acid Substances 0.000 description 1
- ZQPPMHVWECSIRJ-UHFFFAOYSA-N Oleic acid Natural products CCCCCCCCC=CCCCCCCCC(O)=O ZQPPMHVWECSIRJ-UHFFFAOYSA-N 0.000 description 1
- 208000010191 Osteitis Deformans Diseases 0.000 description 1
- XAFYCPTXURWXGH-UHFFFAOYSA-N P(O)(O)(O)=S.P(O)(O)=O Chemical compound P(O)(O)(O)=S.P(O)(O)=O XAFYCPTXURWXGH-UHFFFAOYSA-N 0.000 description 1
- 208000027868 Paget disease Diseases 0.000 description 1
- 102000016387 Pancreatic elastase Human genes 0.000 description 1
- 108010067372 Pancreatic elastase Proteins 0.000 description 1
- 206010033645 Pancreatitis Diseases 0.000 description 1
- 241001631646 Papillomaviridae Species 0.000 description 1
- OAICVXFJPJFONN-UHFFFAOYSA-N Phosphorus Chemical compound [P] OAICVXFJPJFONN-UHFFFAOYSA-N 0.000 description 1
- 102000041193 Piwi family Human genes 0.000 description 1
- 108091061182 Piwi family Proteins 0.000 description 1
- 108700001094 Plant Genes Proteins 0.000 description 1
- 101710124239 Poly(A) polymerase Proteins 0.000 description 1
- 229920002732 Polyanhydride Polymers 0.000 description 1
- 239000002202 Polyethylene glycol Substances 0.000 description 1
- 229920000954 Polyglycolide Polymers 0.000 description 1
- 108010039918 Polylysine Proteins 0.000 description 1
- 241001505332 Polyomavirus sp. Species 0.000 description 1
- 229920001710 Polyorthoester Polymers 0.000 description 1
- 208000006664 Precursor Cell Lymphoblastic Leukemia-Lymphoma Diseases 0.000 description 1
- 241000288906 Primates Species 0.000 description 1
- WDVSHHCDHLJJJR-UHFFFAOYSA-N Proflavine Chemical compound C1=CC(N)=CC2=NC3=CC(N)=CC=C3C=C21 WDVSHHCDHLJJJR-UHFFFAOYSA-N 0.000 description 1
- 102100024028 Progonadoliberin-1 Human genes 0.000 description 1
- 108010072866 Prostate-Specific Antigen Proteins 0.000 description 1
- 102100038358 Prostate-specific antigen Human genes 0.000 description 1
- 102100034183 Protein argonaute-1 Human genes 0.000 description 1
- 102100026791 Protein argonaute-3 Human genes 0.000 description 1
- 102100026800 Protein argonaute-4 Human genes 0.000 description 1
- 102100027384 Proto-oncogene tyrosine-protein kinase Src Human genes 0.000 description 1
- 101710122944 Proto-oncogene tyrosine-protein kinase Src Proteins 0.000 description 1
- 102000013009 Pyruvate Kinase Human genes 0.000 description 1
- 108020005115 Pyruvate Kinase Proteins 0.000 description 1
- 108020005093 RNA Precursors Proteins 0.000 description 1
- 238000010802 RNA extraction kit Methods 0.000 description 1
- 230000004570 RNA-binding Effects 0.000 description 1
- 101150066717 Rara gene Proteins 0.000 description 1
- 102100030086 Receptor tyrosine-protein kinase erbB-2 Human genes 0.000 description 1
- 208000006265 Renal cell carcinoma Diseases 0.000 description 1
- 108010052090 Renilla Luciferases Proteins 0.000 description 1
- 101150077555 Ret gene Proteins 0.000 description 1
- 102000003661 Ribonuclease III Human genes 0.000 description 1
- 108010057163 Ribonuclease III Proteins 0.000 description 1
- 102000006382 Ribonucleases Human genes 0.000 description 1
- 108010083644 Ribonucleases Proteins 0.000 description 1
- 102000004389 Ribonucleoproteins Human genes 0.000 description 1
- 108010081734 Ribonucleoproteins Proteins 0.000 description 1
- PYMYPHUHKUWMLA-LMVFSUKVSA-N Ribose Natural products OC[C@@H](O)[C@@H](O)[C@@H](O)C=O PYMYPHUHKUWMLA-LMVFSUKVSA-N 0.000 description 1
- 239000012891 Ringer solution Substances 0.000 description 1
- 108091006627 SLC12A9 Proteins 0.000 description 1
- 241000293869 Salmonella enterica subsp. enterica serovar Typhimurium Species 0.000 description 1
- 241000235347 Schizosaccharomyces pombe Species 0.000 description 1
- 108091058545 Secretory proteins Proteins 0.000 description 1
- 102000040739 Secretory proteins Human genes 0.000 description 1
- 229920002684 Sepharose Polymers 0.000 description 1
- 102000003838 Sialyltransferases Human genes 0.000 description 1
- 108090000141 Sialyltransferases Proteins 0.000 description 1
- 241000700584 Simplexvirus Species 0.000 description 1
- 206010041067 Small cell lung cancer Diseases 0.000 description 1
- 101000996723 Sus scrofa Gonadotropin-releasing hormone receptor Proteins 0.000 description 1
- 229940100514 Syk tyrosine kinase inhibitor Drugs 0.000 description 1
- 210000001744 T-lymphocyte Anatomy 0.000 description 1
- 108091053398 TRIM/RBCC family Proteins 0.000 description 1
- 108010017842 Telomerase Proteins 0.000 description 1
- 206010043276 Teratoma Diseases 0.000 description 1
- FOCVUCIESVLUNU-UHFFFAOYSA-N Thiotepa Chemical compound C1CN1P(N1CC1)(=S)N1CC1 FOCVUCIESVLUNU-UHFFFAOYSA-N 0.000 description 1
- 102000006601 Thymidine Kinase Human genes 0.000 description 1
- 108020004440 Thymidine kinase Proteins 0.000 description 1
- 108091023040 Transcription factor Proteins 0.000 description 1
- 102000040945 Transcription factor Human genes 0.000 description 1
- 102000011408 Tripartite Motif Proteins Human genes 0.000 description 1
- 102000044209 Tumor Suppressor Genes Human genes 0.000 description 1
- 108700025716 Tumor Suppressor Genes Proteins 0.000 description 1
- 208000002495 Uterine Neoplasms Diseases 0.000 description 1
- 102000003848 Uteroglobin Human genes 0.000 description 1
- 108090000203 Uteroglobin Proteins 0.000 description 1
- 241000251539 Vertebrata <Metazoa> Species 0.000 description 1
- JXLYSJRDGCGARV-WWYNWVTFSA-N Vinblastine Natural products O=C(O[C@H]1[C@](O)(C(=O)OC)[C@@H]2N(C)c3c(cc(c(OC)c3)[C@]3(C(=O)OC)c4[nH]c5c(c4CCN4C[C@](O)(CC)C[C@H](C3)C4)cccc5)[C@@]32[C@H]2[C@@]1(CC)C=CCN2CC3)C JXLYSJRDGCGARV-WWYNWVTFSA-N 0.000 description 1
- 108020000999 Viral RNA Proteins 0.000 description 1
- 208000036142 Viral infection Diseases 0.000 description 1
- 101100467585 Xenopus laevis nras gene Proteins 0.000 description 1
- 230000003187 abdominal effect Effects 0.000 description 1
- 150000001251 acridines Chemical class 0.000 description 1
- 230000009471 action Effects 0.000 description 1
- 239000004480 active ingredient Substances 0.000 description 1
- 230000009056 active transport Effects 0.000 description 1
- 230000001154 acute effect Effects 0.000 description 1
- 239000000654 additive Substances 0.000 description 1
- 230000001919 adrenal effect Effects 0.000 description 1
- 238000001042 affinity chromatography Methods 0.000 description 1
- 239000008272 agar Substances 0.000 description 1
- 230000001476 alcoholic effect Effects 0.000 description 1
- 230000002152 alkylating effect Effects 0.000 description 1
- HMFHBZSHGGEWLO-UHFFFAOYSA-N alpha-D-Furanose-Ribose Natural products OCC1OC(O)C(O)C1O HMFHBZSHGGEWLO-UHFFFAOYSA-N 0.000 description 1
- 229960000473 altretamine Drugs 0.000 description 1
- 150000001412 amines Chemical class 0.000 description 1
- ROBVIMPUHSLWNV-UHFFFAOYSA-N aminoglutethimide Chemical compound C=1C=C(N)C=CC=1C1(CC)CCC(=O)NC1=O ROBVIMPUHSLWNV-UHFFFAOYSA-N 0.000 description 1
- 229960003437 aminoglutethimide Drugs 0.000 description 1
- HSTJJKALJLWLBR-UHFFFAOYSA-N aminophosphonic acid;2-methoxyethoxyphosphonamidic acid Chemical compound NP(O)(O)=O.COCCOP(N)(O)=O HSTJJKALJLWLBR-UHFFFAOYSA-N 0.000 description 1
- 230000003321 amplification Effects 0.000 description 1
- XCPGHVQEEXUHNC-UHFFFAOYSA-N amsacrine Chemical compound COC1=CC(NS(C)(=O)=O)=CC=C1NC1=C(C=CC=C2)C2=NC2=CC=CC=C12 XCPGHVQEEXUHNC-UHFFFAOYSA-N 0.000 description 1
- 229960001220 amsacrine Drugs 0.000 description 1
- 235000019418 amylase Nutrition 0.000 description 1
- 210000004102 animal cell Anatomy 0.000 description 1
- 239000000427 antigen Substances 0.000 description 1
- 108091007433 antigens Proteins 0.000 description 1
- 102000036639 antigens Human genes 0.000 description 1
- VEQOALNAAJBPNY-UHFFFAOYSA-N antipyrine Chemical compound CN1C(C)=CC(=O)N1C1=CC=CC=C1 VEQOALNAAJBPNY-UHFFFAOYSA-N 0.000 description 1
- 239000000074 antisense oligonucleotide Substances 0.000 description 1
- 238000012230 antisense oligonucleotides Methods 0.000 description 1
- 229940027998 antiseptic and disinfectant acridine derivative Drugs 0.000 description 1
- 238000013459 approach Methods 0.000 description 1
- 239000008365 aqueous carrier Substances 0.000 description 1
- 239000003125 aqueous solvent Substances 0.000 description 1
- 238000003491 array Methods 0.000 description 1
- 125000003118 aryl group Chemical group 0.000 description 1
- 229960003272 asparaginase Drugs 0.000 description 1
- DCXYFEDJOCDNAF-UHFFFAOYSA-M asparaginate Chemical compound [O-]C(=O)C(N)CC(N)=O DCXYFEDJOCDNAF-UHFFFAOYSA-M 0.000 description 1
- 230000003140 astrocytic effect Effects 0.000 description 1
- 210000003050 axon Anatomy 0.000 description 1
- 229960002756 azacitidine Drugs 0.000 description 1
- VSRXQHXAPYXROS-UHFFFAOYSA-N azanide;cyclobutane-1,1-dicarboxylic acid;platinum(2+) Chemical compound [NH2-].[NH2-].[Pt+2].OC(=O)C1(C(O)=O)CCC1 VSRXQHXAPYXROS-UHFFFAOYSA-N 0.000 description 1
- 108010005774 beta-Galactosidase Proteins 0.000 description 1
- 108010087173 bile salt-stimulated lipase Proteins 0.000 description 1
- 201000009036 biliary tract cancer Diseases 0.000 description 1
- 208000020790 biliary tract neoplasm Diseases 0.000 description 1
- 238000002306 biochemical method Methods 0.000 description 1
- 229920002988 biodegradable polymer Polymers 0.000 description 1
- 239000004621 biodegradable polymer Substances 0.000 description 1
- 230000031018 biological processes and functions Effects 0.000 description 1
- 230000005540 biological transmission Effects 0.000 description 1
- 229960001561 bleomycin Drugs 0.000 description 1
- OYVAGSVQBOHSSS-UAPAGMARSA-O bleomycin A2 Chemical compound N([C@H](C(=O)N[C@H](C)[C@@H](O)[C@H](C)C(=O)N[C@@H]([C@H](O)C)C(=O)NCCC=1SC=C(N=1)C=1SC=C(N=1)C(=O)NCCC[S+](C)C)[C@@H](O[C@H]1[C@H]([C@@H](O)[C@H](O)[C@H](CO)O1)O[C@@H]1[C@H]([C@@H](OC(N)=O)[C@H](O)[C@@H](CO)O1)O)C=1N=CNC=1)C(=O)C1=NC([C@H](CC(N)=O)NC[C@H](N)C(N)=O)=NC(N)=C1C OYVAGSVQBOHSSS-UAPAGMARSA-O 0.000 description 1
- 230000000903 blocking effect Effects 0.000 description 1
- 210000000601 blood cell Anatomy 0.000 description 1
- 210000004204 blood vessel Anatomy 0.000 description 1
- 210000001185 bone marrow Anatomy 0.000 description 1
- 238000009395 breeding Methods 0.000 description 1
- 230000001488 breeding effect Effects 0.000 description 1
- 239000004067 bulking agent Substances 0.000 description 1
- 229960002092 busulfan Drugs 0.000 description 1
- 239000001506 calcium phosphate Substances 0.000 description 1
- 229910000389 calcium phosphate Inorganic materials 0.000 description 1
- 235000011010 calcium phosphates Nutrition 0.000 description 1
- 230000004611 cancer cell death Effects 0.000 description 1
- 239000012830 cancer therapeutic Substances 0.000 description 1
- 238000005251 capillar electrophoresis Methods 0.000 description 1
- 239000002775 capsule Substances 0.000 description 1
- 150000001720 carbohydrates Chemical class 0.000 description 1
- 235000014633 carbohydrates Nutrition 0.000 description 1
- 229960004562 carboplatin Drugs 0.000 description 1
- 231100000357 carcinogen Toxicity 0.000 description 1
- 239000003183 carcinogenic agent Substances 0.000 description 1
- 229960005243 carmustine Drugs 0.000 description 1
- 125000002091 cationic group Chemical group 0.000 description 1
- 230000001364 causal effect Effects 0.000 description 1
- 230000022131 cell cycle Effects 0.000 description 1
- 230000010261 cell growth Effects 0.000 description 1
- 230000004709 cell invasion Effects 0.000 description 1
- 239000013592 cell lysate Substances 0.000 description 1
- 210000003169 central nervous system Anatomy 0.000 description 1
- 230000008859 change Effects 0.000 description 1
- JCKYGMPEJWAADB-UHFFFAOYSA-N chlorambucil Chemical compound OC(=O)CCCC1=CC=C(N(CCCl)CCCl)C=C1 JCKYGMPEJWAADB-UHFFFAOYSA-N 0.000 description 1
- 229960004630 chlorambucil Drugs 0.000 description 1
- 150000001840 cholesterol esters Chemical class 0.000 description 1
- 210000003711 chorioallantoic membrane Anatomy 0.000 description 1
- 208000024207 chronic leukemia Diseases 0.000 description 1
- DQLATGHUWYMOKM-UHFFFAOYSA-L cisplatin Chemical compound N[Pt](N)(Cl)Cl DQLATGHUWYMOKM-UHFFFAOYSA-L 0.000 description 1
- 229960004316 cisplatin Drugs 0.000 description 1
- 238000000576 coating method Methods 0.000 description 1
- 239000003240 coconut oil Substances 0.000 description 1
- 235000019864 coconut oil Nutrition 0.000 description 1
- 230000000052 comparative effect Effects 0.000 description 1
- 239000007891 compressed tablet Substances 0.000 description 1
- 238000010276 construction Methods 0.000 description 1
- 239000012059 conventional drug carrier Substances 0.000 description 1
- 238000011443 conventional therapy Methods 0.000 description 1
- 230000002596 correlated effect Effects 0.000 description 1
- 239000006071 cream Substances 0.000 description 1
- 239000000287 crude extract Substances 0.000 description 1
- 239000013078 crystal Substances 0.000 description 1
- 238000012258 culturing Methods 0.000 description 1
- 208000035250 cutaneous malignant susceptibility to 1 melanoma Diseases 0.000 description 1
- 229960004397 cyclophosphamide Drugs 0.000 description 1
- 230000000120 cytopathologic effect Effects 0.000 description 1
- 210000000805 cytoplasm Anatomy 0.000 description 1
- 231100000433 cytotoxic Toxicity 0.000 description 1
- 230000001472 cytotoxic effect Effects 0.000 description 1
- 229960003901 dacarbazine Drugs 0.000 description 1
- 229960000975 daunorubicin Drugs 0.000 description 1
- 230000007812 deficiency Effects 0.000 description 1
- 230000002950 deficient Effects 0.000 description 1
- 230000000593 degrading effect Effects 0.000 description 1
- 230000003111 delayed effect Effects 0.000 description 1
- 239000002274 desiccant Substances 0.000 description 1
- 239000000032 diagnostic agent Substances 0.000 description 1
- 229940039227 diagnostic agent Drugs 0.000 description 1
- PXBRQCKWGAHEHS-UHFFFAOYSA-N dichlorodifluoromethane Chemical compound FC(F)(Cl)Cl PXBRQCKWGAHEHS-UHFFFAOYSA-N 0.000 description 1
- 235000019404 dichlorodifluoromethane Nutrition 0.000 description 1
- QONQRTHLHBTMGP-UHFFFAOYSA-N digitoxigenin Natural products CC12CCC(C3(CCC(O)CC3CC3)C)C3C11OC1CC2C1=CC(=O)OC1 QONQRTHLHBTMGP-UHFFFAOYSA-N 0.000 description 1
- SHIBSTMRCDJXLN-KCZCNTNESA-N digoxigenin Chemical compound C1([C@@H]2[C@@]3([C@@](CC2)(O)[C@H]2[C@@H]([C@@]4(C)CC[C@H](O)C[C@H]4CC2)C[C@H]3O)C)=CC(=O)OC1 SHIBSTMRCDJXLN-KCZCNTNESA-N 0.000 description 1
- 239000003085 diluting agent Substances 0.000 description 1
- NAGJZTKCGNOGPW-UHFFFAOYSA-K dioxido-sulfanylidene-sulfido-$l^{5}-phosphane Chemical compound [O-]P([O-])([S-])=S NAGJZTKCGNOGPW-UHFFFAOYSA-K 0.000 description 1
- USIUVYZYUHIAEV-UHFFFAOYSA-N diphenyl ether Chemical compound C=1C=CC=CC=1OC1=CC=CC=C1 USIUVYZYUHIAEV-UHFFFAOYSA-N 0.000 description 1
- 210000001840 diploid cell Anatomy 0.000 description 1
- POLCUAVZOMRGSN-UHFFFAOYSA-N dipropyl ether Chemical compound CCCOCCC POLCUAVZOMRGSN-UHFFFAOYSA-N 0.000 description 1
- 230000005750 disease progression Effects 0.000 description 1
- 239000002270 dispersing agent Substances 0.000 description 1
- 238000002224 dissection Methods 0.000 description 1
- 238000004090 dissolution Methods 0.000 description 1
- POULHZVOKOAJMA-UHFFFAOYSA-N dodecanoic acid Chemical class CCCCCCCCCCCC(O)=O POULHZVOKOAJMA-UHFFFAOYSA-N 0.000 description 1
- 239000002552 dosage form Substances 0.000 description 1
- 230000012361 double-strand break repair Effects 0.000 description 1
- 230000002222 downregulating effect Effects 0.000 description 1
- 229960004679 doxorubicin Drugs 0.000 description 1
- 239000006196 drop Substances 0.000 description 1
- 230000009977 dual effect Effects 0.000 description 1
- 239000012636 effector Substances 0.000 description 1
- 239000003792 electrolyte Substances 0.000 description 1
- 238000001962 electrophoresis Methods 0.000 description 1
- 238000010828 elution Methods 0.000 description 1
- 238000004945 emulsification Methods 0.000 description 1
- 239000003995 emulsifying agent Substances 0.000 description 1
- 230000012202 endocytosis Effects 0.000 description 1
- 210000004696 endometrium Anatomy 0.000 description 1
- 230000002708 enhancing effect Effects 0.000 description 1
- 230000007613 environmental effect Effects 0.000 description 1
- 238000009585 enzyme analysis Methods 0.000 description 1
- 210000002919 epithelial cell Anatomy 0.000 description 1
- 210000000981 epithelium Anatomy 0.000 description 1
- 229960001842 estramustine Drugs 0.000 description 1
- FRPJXPJMRWBBIH-RBRWEJTLSA-N estramustine Chemical compound ClCCN(CCCl)C(=O)OC1=CC=C2[C@H]3CC[C@](C)([C@H](CC4)O)[C@@H]4[C@@H]3CCC2=C1 FRPJXPJMRWBBIH-RBRWEJTLSA-N 0.000 description 1
- LVGKNOAMLMIIKO-QXMHVHEDSA-N ethyl oleate Chemical compound CCCCCCCC\C=C/CCCCCCCC(=O)OCC LVGKNOAMLMIIKO-QXMHVHEDSA-N 0.000 description 1
- 229940093471 ethyl oleate Drugs 0.000 description 1
- VJJPUSNTGOMMGY-MRVIYFEKSA-N etoposide Chemical compound COC1=C(O)C(OC)=CC([C@@H]2C3=CC=4OCOC=4C=C3[C@@H](O[C@H]3[C@@H]([C@@H](O)[C@@H]4O[C@H](C)OC[C@H]4O3)O)[C@@H]3[C@@H]2C(OC3)=O)=C1 VJJPUSNTGOMMGY-MRVIYFEKSA-N 0.000 description 1
- 229960005420 etoposide Drugs 0.000 description 1
- 230000007717 exclusion Effects 0.000 description 1
- 230000001747 exhibiting effect Effects 0.000 description 1
- 238000013265 extended release Methods 0.000 description 1
- 239000000284 extract Substances 0.000 description 1
- 210000005002 female reproductive tract Anatomy 0.000 description 1
- 239000000945 filler Substances 0.000 description 1
- 239000012467 final product Substances 0.000 description 1
- ODKNJVUHOIMIIZ-RRKCRQDMSA-N floxuridine Chemical compound C1[C@H](O)[C@@H](CO)O[C@H]1N1C(=O)NC(=O)C(F)=C1 ODKNJVUHOIMIIZ-RRKCRQDMSA-N 0.000 description 1
- 229960000961 floxuridine Drugs 0.000 description 1
- MHMNJMPURVTYEJ-UHFFFAOYSA-N fluorescein-5-isothiocyanate Chemical compound O1C(=O)C2=CC(N=C=S)=CC=C2C21C1=CC=C(O)C=C1OC1=CC(O)=CC=C21 MHMNJMPURVTYEJ-UHFFFAOYSA-N 0.000 description 1
- 229960002949 fluorouracil Drugs 0.000 description 1
- 229960002074 flutamide Drugs 0.000 description 1
- MKXKFYHWDHIYRV-UHFFFAOYSA-N flutamide Chemical compound CC(C)C(=O)NC1=CC=C([N+]([O-])=O)C(C(F)(F)F)=C1 MKXKFYHWDHIYRV-UHFFFAOYSA-N 0.000 description 1
- 230000004907 flux Effects 0.000 description 1
- 229960005005 fomivirsen sodium Drugs 0.000 description 1
- 238000013467 fragmentation Methods 0.000 description 1
- 238000006062 fragmentation reaction Methods 0.000 description 1
- 238000001502 gel electrophoresis Methods 0.000 description 1
- 238000001641 gel filtration chromatography Methods 0.000 description 1
- 238000010359 gene isolation Methods 0.000 description 1
- 230000030279 gene silencing Effects 0.000 description 1
- 230000014684 gene silencing by miRNA Effects 0.000 description 1
- 238000001415 gene therapy Methods 0.000 description 1
- 238000012252 genetic analysis Methods 0.000 description 1
- 238000010353 genetic engineering Methods 0.000 description 1
- 239000003365 glass fiber Substances 0.000 description 1
- 210000002149 gonad Anatomy 0.000 description 1
- XLXSAKCOAKORKW-UHFFFAOYSA-N gonadorelin Chemical compound C1CCC(C(=O)NCC(N)=O)N1C(=O)C(CCCN=C(N)N)NC(=O)C(CC(C)C)NC(=O)CNC(=O)C(NC(=O)C(CO)NC(=O)C(CC=1C2=CC=CC=C2NC=1)NC(=O)C(CC=1NC=NC=1)NC(=O)C1NC(=O)CC1)CC1=CC=C(O)C=C1 XLXSAKCOAKORKW-UHFFFAOYSA-N 0.000 description 1
- 238000005469 granulation Methods 0.000 description 1
- 230000003179 granulation Effects 0.000 description 1
- 238000000227 grinding Methods 0.000 description 1
- 208000035474 group of disease Diseases 0.000 description 1
- 239000003102 growth factor Substances 0.000 description 1
- 230000003394 haemopoietic effect Effects 0.000 description 1
- 210000005003 heart tissue Anatomy 0.000 description 1
- 201000005787 hematologic cancer Diseases 0.000 description 1
- 208000024200 hematopoietic and lymphoid system neoplasm Diseases 0.000 description 1
- UUVWYPNAQBNQJQ-UHFFFAOYSA-N hexamethylmelamine Chemical compound CN(C)C1=NC(N(C)C)=NC(N(C)C)=N1 UUVWYPNAQBNQJQ-UHFFFAOYSA-N 0.000 description 1
- 238000004128 high performance liquid chromatography Methods 0.000 description 1
- 102000043827 human Smooth muscle Human genes 0.000 description 1
- 108700038605 human Smooth muscle Proteins 0.000 description 1
- 239000001257 hydrogen Substances 0.000 description 1
- 229910052739 hydrogen Inorganic materials 0.000 description 1
- 238000004191 hydrophobic interaction chromatography Methods 0.000 description 1
- 229960001101 ifosfamide Drugs 0.000 description 1
- HOMGKSMUEGBAAB-UHFFFAOYSA-N ifosfamide Chemical compound ClCCNP1(=O)OCCCN1CCCl HOMGKSMUEGBAAB-UHFFFAOYSA-N 0.000 description 1
- 210000002865 immune cell Anatomy 0.000 description 1
- 230000001900 immune effect Effects 0.000 description 1
- 230000036039 immunity Effects 0.000 description 1
- 230000000951 immunodiffusion Effects 0.000 description 1
- 238000000760 immunoelectrophoresis Methods 0.000 description 1
- 239000000367 immunologic factor Substances 0.000 description 1
- 239000011261 inert gas Substances 0.000 description 1
- 230000002458 infectious effect Effects 0.000 description 1
- 239000004615 ingredient Substances 0.000 description 1
- 230000000977 initiatory effect Effects 0.000 description 1
- 229960003786 inosine Drugs 0.000 description 1
- 230000003914 insulin secretion Effects 0.000 description 1
- 102000028416 insulin-like growth factor binding Human genes 0.000 description 1
- 108091022911 insulin-like growth factor binding Proteins 0.000 description 1
- 230000010354 integration Effects 0.000 description 1
- 230000002452 interceptive effect Effects 0.000 description 1
- 229940079322 interferon Drugs 0.000 description 1
- 239000000543 intermediate Substances 0.000 description 1
- 230000003834 intracellular effect Effects 0.000 description 1
- 230000009545 invasion Effects 0.000 description 1
- 238000004255 ion exchange chromatography Methods 0.000 description 1
- 238000002955 isolation Methods 0.000 description 1
- QXJSBBXBKPUZAA-UHFFFAOYSA-N isooleic acid Natural products CCCCCCCC=CCCCCCCCCC(O)=O QXJSBBXBKPUZAA-UHFFFAOYSA-N 0.000 description 1
- 210000002510 keratinocyte Anatomy 0.000 description 1
- 210000003734 kidney Anatomy 0.000 description 1
- 238000011005 laboratory method Methods 0.000 description 1
- 101150066555 lacZ gene Proteins 0.000 description 1
- 230000009571 larval growth Effects 0.000 description 1
- 206010023841 laryngeal neoplasm Diseases 0.000 description 1
- 230000003902 lesion Effects 0.000 description 1
- 108091045440 let-7a-1 stem-loop Proteins 0.000 description 1
- 108091047557 let-7a-3 stem-loop Proteins 0.000 description 1
- GFIJNRVAKGFPGQ-LIJARHBVSA-N leuprolide Chemical compound CCNC(=O)[C@@H]1CCCN1C(=O)[C@H](CCCNC(N)=N)NC(=O)[C@H](CC(C)C)NC(=O)[C@@H](CC(C)C)NC(=O)[C@@H](NC(=O)[C@H](CO)NC(=O)[C@H](CC=1C2=CC=CC=C2NC=1)NC(=O)[C@H](CC=1N=CNC=1)NC(=O)[C@H]1NC(=O)CC1)CC1=CC=C(O)C=C1 GFIJNRVAKGFPGQ-LIJARHBVSA-N 0.000 description 1
- 229960004338 leuprorelin Drugs 0.000 description 1
- 239000003446 ligand Substances 0.000 description 1
- 101150072601 lin-14 gene Proteins 0.000 description 1
- 101150111214 lin-28 gene Proteins 0.000 description 1
- 206010024627 liposarcoma Diseases 0.000 description 1
- 239000007788 liquid Substances 0.000 description 1
- SMEROWZSTRWXGI-HVATVPOCSA-N lithocholic acid Chemical class C([C@H]1CC2)[C@H](O)CC[C@]1(C)[C@@H]1[C@@H]2[C@@H]2CC[C@H]([C@@H](CCC(O)=O)C)[C@@]2(C)CC1 SMEROWZSTRWXGI-HVATVPOCSA-N 0.000 description 1
- 210000004185 liver Anatomy 0.000 description 1
- 230000004807 localization Effects 0.000 description 1
- 230000033001 locomotion Effects 0.000 description 1
- 229960002247 lomustine Drugs 0.000 description 1
- 230000007774 longterm Effects 0.000 description 1
- ZBJWWKFMHOAPNS-UHFFFAOYSA-N loretin Chemical compound C1=CN=C2C(O)=C(I)C=C(S(O)(=O)=O)C2=C1 ZBJWWKFMHOAPNS-UHFFFAOYSA-N 0.000 description 1
- 229950010248 loretin Drugs 0.000 description 1
- 239000006210 lotion Substances 0.000 description 1
- 201000005296 lung carcinoma Diseases 0.000 description 1
- 201000005243 lung squamous cell carcinoma Diseases 0.000 description 1
- 210000002751 lymph Anatomy 0.000 description 1
- 210000004698 lymphocyte Anatomy 0.000 description 1
- 238000012792 lyophilization process Methods 0.000 description 1
- 239000006166 lysate Substances 0.000 description 1
- 230000002101 lytic effect Effects 0.000 description 1
- 230000036210 malignancy Effects 0.000 description 1
- 210000001161 mammalian embryo Anatomy 0.000 description 1
- 208000027202 mammary Paget disease Diseases 0.000 description 1
- 210000004216 mammary stem cell Anatomy 0.000 description 1
- 239000000463 material Substances 0.000 description 1
- 229960004961 mechlorethamine Drugs 0.000 description 1
- HAWPXGHAZFHHAD-UHFFFAOYSA-N mechlorethamine Chemical class ClCCN(C)CCCl HAWPXGHAZFHHAD-UHFFFAOYSA-N 0.000 description 1
- QZIQJVCYUQZDIR-UHFFFAOYSA-N mechlorethamine hydrochloride Chemical compound Cl.ClCCN(C)CCCl QZIQJVCYUQZDIR-UHFFFAOYSA-N 0.000 description 1
- 239000002609 medium Substances 0.000 description 1
- SGDBTWWWUNNDEQ-LBPRGKRZSA-N melphalan Chemical compound OC(=O)[C@@H](N)CC1=CC=C(N(CCCl)CCCl)C=C1 SGDBTWWWUNNDEQ-LBPRGKRZSA-N 0.000 description 1
- 229960001924 melphalan Drugs 0.000 description 1
- 239000012528 membrane Substances 0.000 description 1
- GLVAUDGFNGKCSF-UHFFFAOYSA-N mercaptopurine Chemical compound S=C1NC=NC2=C1NC=N2 GLVAUDGFNGKCSF-UHFFFAOYSA-N 0.000 description 1
- 229960001428 mercaptopurine Drugs 0.000 description 1
- 229960004635 mesna Drugs 0.000 description 1
- 229910052751 metal Inorganic materials 0.000 description 1
- 239000002184 metal Substances 0.000 description 1
- 229910021645 metal ion Inorganic materials 0.000 description 1
- 230000001394 metastastic effect Effects 0.000 description 1
- 208000037819 metastatic cancer Diseases 0.000 description 1
- 208000011575 metastatic malignant neoplasm Diseases 0.000 description 1
- 108091057645 miR-15 stem-loop Proteins 0.000 description 1
- 108091027943 miR-16 stem-loop Proteins 0.000 description 1
- 108091091751 miR-17 stem-loop Proteins 0.000 description 1
- 108091069239 miR-17-2 stem-loop Proteins 0.000 description 1
- 108091027698 miR-18-1 stem-loop Proteins 0.000 description 1
- 108091090961 miR-18-2 stem-loop Proteins 0.000 description 1
- 108091055042 miR-181 stem-loop Proteins 0.000 description 1
- 108091074848 miR-19 stem-loop Proteins 0.000 description 1
- 108091087148 miR-20 stem-loop Proteins 0.000 description 1
- 108091066984 miR-20-1 stem-loop Proteins 0.000 description 1
- 108091076199 miR-20-2 stem-loop Proteins 0.000 description 1
- 108091063383 miR-237 stem-loop Proteins 0.000 description 1
- 108091043953 miR-373 stem-loop Proteins 0.000 description 1
- 239000002480 mineral oil Substances 0.000 description 1
- 235000010446 mineral oil Nutrition 0.000 description 1
- 230000033607 mismatch repair Effects 0.000 description 1
- 229960003539 mitoguazone Drugs 0.000 description 1
- MXWHMTNPTTVWDM-NXOFHUPFSA-N mitoguazone Chemical compound NC(N)=N\N=C(/C)\C=N\N=C(N)N MXWHMTNPTTVWDM-NXOFHUPFSA-N 0.000 description 1
- 229960004857 mitomycin Drugs 0.000 description 1
- 229960001156 mitoxantrone Drugs 0.000 description 1
- KKZJGLLVHKMTCM-UHFFFAOYSA-N mitoxantrone Chemical compound O=C1C2=C(O)C=CC(O)=C2C(=O)C2=C1C(NCCNCCO)=CC=C2NCCNCCO KKZJGLLVHKMTCM-UHFFFAOYSA-N 0.000 description 1
- 238000001823 molecular biology technique Methods 0.000 description 1
- 230000021332 multicellular organism growth Effects 0.000 description 1
- 210000003205 muscle Anatomy 0.000 description 1
- 108700024542 myc Genes Proteins 0.000 description 1
- 208000025113 myeloid leukemia Diseases 0.000 description 1
- 210000004457 myocytus nodalis Anatomy 0.000 description 1
- 239000002105 nanoparticle Substances 0.000 description 1
- 210000000822 natural killer cell Anatomy 0.000 description 1
- 229930014626 natural product Natural products 0.000 description 1
- 239000006199 nebulizer Substances 0.000 description 1
- 230000009826 neoplastic cell growth Effects 0.000 description 1
- 210000000653 nervous system Anatomy 0.000 description 1
- 201000011682 nervous system cancer Diseases 0.000 description 1
- 229910052757 nitrogen Inorganic materials 0.000 description 1
- 208000002154 non-small cell lung carcinoma Diseases 0.000 description 1
- 239000012457 nonaqueous media Substances 0.000 description 1
- 230000005937 nuclear translocation Effects 0.000 description 1
- 238000003199 nucleic acid amplification method Methods 0.000 description 1
- 238000007899 nucleic acid hybridization Methods 0.000 description 1
- 238000011580 nude mouse model Methods 0.000 description 1
- 235000015097 nutrients Nutrition 0.000 description 1
- 229920001778 nylon Polymers 0.000 description 1
- 229960002700 octreotide Drugs 0.000 description 1
- 239000002674 ointment Substances 0.000 description 1
- ZQPPMHVWECSIRJ-KTKRTIGZSA-N oleic acid Chemical compound CCCCCCCC\C=C/CCCCCCCC(O)=O ZQPPMHVWECSIRJ-KTKRTIGZSA-N 0.000 description 1
- 239000004006 olive oil Substances 0.000 description 1
- 235000008390 olive oil Nutrition 0.000 description 1
- 239000006186 oral dosage form Substances 0.000 description 1
- 150000002895 organic esters Chemical class 0.000 description 1
- 208000008798 osteoma Diseases 0.000 description 1
- 210000001672 ovary Anatomy 0.000 description 1
- 238000007911 parenteral administration Methods 0.000 description 1
- 230000009057 passive transport Effects 0.000 description 1
- 239000013610 patient sample Substances 0.000 description 1
- 238000000059 patterning Methods 0.000 description 1
- 229960002340 pentostatin Drugs 0.000 description 1
- FPVKHBSQESCIEP-JQCXWYLXSA-N pentostatin Chemical compound C1[C@H](O)[C@@H](CO)O[C@H]1N1C(N=CNC[C@H]2O)=C2N=C1 FPVKHBSQESCIEP-JQCXWYLXSA-N 0.000 description 1
- 239000000863 peptide conjugate Substances 0.000 description 1
- 210000004786 perivascular cell Anatomy 0.000 description 1
- 230000000144 pharmacologic effect Effects 0.000 description 1
- 125000002467 phosphate group Chemical group [H]OP(=O)(O[H])O[*] 0.000 description 1
- 229930029653 phosphoenolpyruvate Natural products 0.000 description 1
- DTBNBXWJWCWCIK-UHFFFAOYSA-N phosphoenolpyruvic acid Chemical compound OC(=O)C(=C)OP(O)(O)=O DTBNBXWJWCWCIK-UHFFFAOYSA-N 0.000 description 1
- 150000008300 phosphoramidites Chemical class 0.000 description 1
- 229910052698 phosphorus Inorganic materials 0.000 description 1
- 239000011574 phosphorus Substances 0.000 description 1
- 230000000704 physical effect Effects 0.000 description 1
- 230000035479 physiological effects, processes and functions Effects 0.000 description 1
- 230000036470 plasma concentration Effects 0.000 description 1
- 229920000747 poly(lactic acid) Polymers 0.000 description 1
- 229920000768 polyamine Polymers 0.000 description 1
- 229920001610 polycaprolactone Polymers 0.000 description 1
- 239000004632 polycaprolactone Substances 0.000 description 1
- 229920006149 polyester-amide block copolymer Polymers 0.000 description 1
- 229920001223 polyethylene glycol Polymers 0.000 description 1
- 239000004633 polyglycolic acid Substances 0.000 description 1
- 239000004626 polylactic acid Substances 0.000 description 1
- 229920000656 polylysine Polymers 0.000 description 1
- 102000040430 polynucleotide Human genes 0.000 description 1
- 108091033319 polynucleotide Proteins 0.000 description 1
- 239000002157 polynucleotide Substances 0.000 description 1
- 229920001451 polypropylene glycol Polymers 0.000 description 1
- 230000001124 posttranscriptional effect Effects 0.000 description 1
- 229940124606 potential therapeutic agent Drugs 0.000 description 1
- 230000003389 potentiating effect Effects 0.000 description 1
- 125000002924 primary amino group Chemical group [H]N([H])* 0.000 description 1
- 230000000861 pro-apoptotic effect Effects 0.000 description 1
- 229960000624 procarbazine Drugs 0.000 description 1
- CPTBDICYNRMXFX-UHFFFAOYSA-N procarbazine Chemical compound CNNCC1=CC=C(C(=O)NC(C)C)C=C1 CPTBDICYNRMXFX-UHFFFAOYSA-N 0.000 description 1
- 229960000286 proflavine Drugs 0.000 description 1
- 230000035755 proliferation Effects 0.000 description 1
- 230000009682 proliferation pathway Effects 0.000 description 1
- 230000002035 prolonged effect Effects 0.000 description 1
- 239000001294 propane Substances 0.000 description 1
- 238000011321 prophylaxis Methods 0.000 description 1
- XNSAINXGIQZQOO-SRVKXCTJSA-N protirelin Chemical compound NC(=O)[C@@H]1CCCN1C(=O)[C@@H](NC(=O)[C@H]1NC(=O)CC1)CC1=CN=CN1 XNSAINXGIQZQOO-SRVKXCTJSA-N 0.000 description 1
- ZCCUUQDIBDJBTK-UHFFFAOYSA-N psoralen Chemical class C1=C2OC(=O)C=CC2=CC2=C1OC=C2 ZCCUUQDIBDJBTK-UHFFFAOYSA-N 0.000 description 1
- 238000004445 quantitative analysis Methods 0.000 description 1
- 230000002285 radioactive effect Effects 0.000 description 1
- 238000000163 radioactive labelling Methods 0.000 description 1
- 238000002601 radiography Methods 0.000 description 1
- 238000002708 random mutagenesis Methods 0.000 description 1
- 230000000384 rearing effect Effects 0.000 description 1
- 238000011084 recovery Methods 0.000 description 1
- 230000022983 regulation of cell cycle Effects 0.000 description 1
- 230000022532 regulation of transcription, DNA-dependent Effects 0.000 description 1
- 239000003488 releasing hormone Substances 0.000 description 1
- 230000008439 repair process Effects 0.000 description 1
- 230000010076 replication Effects 0.000 description 1
- 230000000754 repressing effect Effects 0.000 description 1
- 238000012827 research and development Methods 0.000 description 1
- 230000004044 response Effects 0.000 description 1
- 230000003938 response to stress Effects 0.000 description 1
- 108091008146 restriction endonucleases Proteins 0.000 description 1
- 238000010839 reverse transcription Methods 0.000 description 1
- 238000003757 reverse transcription PCR Methods 0.000 description 1
- 201000009410 rhabdomyosarcoma Diseases 0.000 description 1
- 102200006539 rs121913529 Human genes 0.000 description 1
- 150000003839 salts Chemical class 0.000 description 1
- 238000003345 scintillation counting Methods 0.000 description 1
- 238000012216 screening Methods 0.000 description 1
- 230000003248 secreting effect Effects 0.000 description 1
- 229960003440 semustine Drugs 0.000 description 1
- 230000035945 sensitivity Effects 0.000 description 1
- 238000012163 sequencing technique Methods 0.000 description 1
- 239000008159 sesame oil Substances 0.000 description 1
- 235000011803 sesame oil Nutrition 0.000 description 1
- 229920000260 silastic Polymers 0.000 description 1
- 239000000377 silicon dioxide Substances 0.000 description 1
- 201000008261 skin carcinoma Diseases 0.000 description 1
- 210000004927 skin cell Anatomy 0.000 description 1
- 208000000587 small cell lung carcinoma Diseases 0.000 description 1
- 239000011734 sodium Substances 0.000 description 1
- 229910052708 sodium Inorganic materials 0.000 description 1
- 239000007787 solid Substances 0.000 description 1
- 239000007790 solid phase Substances 0.000 description 1
- 210000001082 somatic cell Anatomy 0.000 description 1
- 230000000392 somatic effect Effects 0.000 description 1
- 238000002798 spectrophotometry method Methods 0.000 description 1
- 238000010561 standard procedure Methods 0.000 description 1
- 230000004936 stimulating effect Effects 0.000 description 1
- 210000002784 stomach Anatomy 0.000 description 1
- 229960001052 streptozocin Drugs 0.000 description 1
- ZSJLQEPLLKMAKR-GKHCUFPYSA-N streptozocin Chemical compound O=NN(C)C(=O)N[C@H]1[C@@H](O)O[C@H](CO)[C@@H](O)[C@@H]1O ZSJLQEPLLKMAKR-GKHCUFPYSA-N 0.000 description 1
- 210000002536 stromal cell Anatomy 0.000 description 1
- 239000000126 substance Substances 0.000 description 1
- 150000008163 sugars Chemical class 0.000 description 1
- 239000013589 supplement Substances 0.000 description 1
- 230000000153 supplemental effect Effects 0.000 description 1
- 239000000829 suppository Substances 0.000 description 1
- 239000004094 surface-active agent Substances 0.000 description 1
- 230000004654 survival pathway Effects 0.000 description 1
- 230000001360 synchronised effect Effects 0.000 description 1
- 206010042863 synovial sarcoma Diseases 0.000 description 1
- 238000010189 synthetic method Methods 0.000 description 1
- 230000009885 systemic effect Effects 0.000 description 1
- FQZYTYWMLGAPFJ-OQKDUQJOSA-N tamoxifen citrate Chemical compound [H+].[H+].[H+].[O-]C(=O)CC(O)(CC([O-])=O)C([O-])=O.C=1C=CC=CC=1C(/CC)=C(C=1C=CC(OCCN(C)C)=CC=1)/C1=CC=CC=C1 FQZYTYWMLGAPFJ-OQKDUQJOSA-N 0.000 description 1
- 229960003454 tamoxifen citrate Drugs 0.000 description 1
- 230000002123 temporal effect Effects 0.000 description 1
- NRUKOCRGYNPUPR-QBPJDGROSA-N teniposide Chemical compound COC1=C(O)C(OC)=CC([C@@H]2C3=CC=4OCOC=4C=C3[C@@H](O[C@H]3[C@@H]([C@@H](O)[C@@H]4O[C@@H](OC[C@H]4O3)C=3SC=CC=3)O)[C@@H]3[C@@H]2C(OC3)=O)=C1 NRUKOCRGYNPUPR-QBPJDGROSA-N 0.000 description 1
- 229960001278 teniposide Drugs 0.000 description 1
- 208000002918 testicular germ cell tumor Diseases 0.000 description 1
- 210000001550 testis Anatomy 0.000 description 1
- 230000004797 therapeutic response Effects 0.000 description 1
- VOVUARRWDCVURC-UHFFFAOYSA-N thiirane Chemical compound C1CS1 VOVUARRWDCVURC-UHFFFAOYSA-N 0.000 description 1
- OFBPGACXRPVDQW-UHFFFAOYSA-N thiirane 1,1-dioxide Chemical compound O=S1(=O)CC1 OFBPGACXRPVDQW-UHFFFAOYSA-N 0.000 description 1
- RYYWUUFWQRZTIU-UHFFFAOYSA-K thiophosphate Chemical compound [O-]P([O-])([O-])=S RYYWUUFWQRZTIU-UHFFFAOYSA-K 0.000 description 1
- 229960001196 thiotepa Drugs 0.000 description 1
- 208000030829 thyroid gland adenocarcinoma Diseases 0.000 description 1
- 208000030901 thyroid gland follicular carcinoma Diseases 0.000 description 1
- 230000036964 tight binding Effects 0.000 description 1
- 229960003087 tioguanine Drugs 0.000 description 1
- 239000003104 tissue culture media Substances 0.000 description 1
- 230000008467 tissue growth Effects 0.000 description 1
- 238000011200 topical administration Methods 0.000 description 1
- 231100000419 toxicity Toxicity 0.000 description 1
- 230000001988 toxicity Effects 0.000 description 1
- 230000005030 transcription termination Effects 0.000 description 1
- 230000037317 transdermal delivery Effects 0.000 description 1
- 238000010361 transduction Methods 0.000 description 1
- 230000026683 transduction Effects 0.000 description 1
- 238000012546 transfer Methods 0.000 description 1
- 230000009466 transformation Effects 0.000 description 1
- 238000013519 translation Methods 0.000 description 1
- 150000003626 triacylglycerols Chemical class 0.000 description 1
- QORWJWZARLRLPR-UHFFFAOYSA-H tricalcium bis(phosphate) Chemical compound [Ca+2].[Ca+2].[Ca+2].[O-]P([O-])([O-])=O.[O-]P([O-])([O-])=O QORWJWZARLRLPR-UHFFFAOYSA-H 0.000 description 1
- 230000005740 tumor formation Effects 0.000 description 1
- 208000029729 tumor suppressor gene on chromosome 11 Diseases 0.000 description 1
- 231100000588 tumorigenic Toxicity 0.000 description 1
- 230000000381 tumorigenic effect Effects 0.000 description 1
- 230000002100 tumorsuppressive effect Effects 0.000 description 1
- 230000004222 uncontrolled growth Effects 0.000 description 1
- 206010046766 uterine cancer Diseases 0.000 description 1
- 229960005486 vaccine Drugs 0.000 description 1
- 230000002792 vascular Effects 0.000 description 1
- 210000003556 vascular endothelial cell Anatomy 0.000 description 1
- 235000015112 vegetable and seed oil Nutrition 0.000 description 1
- 239000008158 vegetable oil Substances 0.000 description 1
- KDQAABAKXDWYSZ-PNYVAJAMSA-N vinblastine sulfate Chemical compound OS(O)(=O)=O.C([C@H](C[C@]1(C(=O)OC)C=2C(=CC3=C([C@]45[C@H]([C@@]([C@H](OC(C)=O)[C@]6(CC)C=CCN([C@H]56)CC4)(O)C(=O)OC)N3C)C=2)OC)C[C@@](C2)(O)CC)N2CCC2=C1NC1=CC=CC=C21 KDQAABAKXDWYSZ-PNYVAJAMSA-N 0.000 description 1
- 229960004982 vinblastine sulfate Drugs 0.000 description 1
- AQTQHPDCURKLKT-JKDPCDLQSA-N vincristine sulfate Chemical compound OS(O)(=O)=O.C([C@@H](C[C@]1(C(=O)OC)C=2C(=CC3=C([C@]45[C@H]([C@@]([C@H](OC(C)=O)[C@]6(CC)C=CCN([C@H]56)CC4)(O)C(=O)OC)N3C=O)C=2)OC)C[C@@](C2)(O)CC)N2CCC2=C1NC1=CC=CC=C21 AQTQHPDCURKLKT-JKDPCDLQSA-N 0.000 description 1
- 229960002110 vincristine sulfate Drugs 0.000 description 1
- 229960005212 vindesine sulfate Drugs 0.000 description 1
- 230000009385 viral infection Effects 0.000 description 1
- XLYOFNOQVPJJNP-UHFFFAOYSA-N water Substances O XLYOFNOQVPJJNP-UHFFFAOYSA-N 0.000 description 1
- 210000005253 yeast cell Anatomy 0.000 description 1
Images
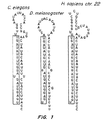
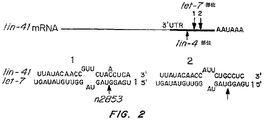
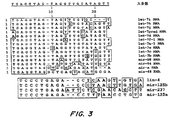
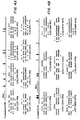
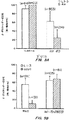
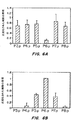

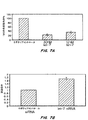
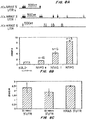

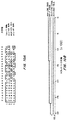
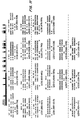

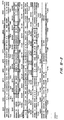



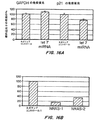
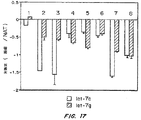
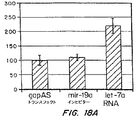


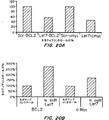
Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/11—DNA or RNA fragments; Modified forms thereof; Non-coding nucleic acids having a biological activity
- C12N15/113—Non-coding nucleic acids modulating the expression of genes, e.g. antisense oligonucleotides; Antisense DNA or RNA; Triplex- forming oligonucleotides; Catalytic nucleic acids, e.g. ribozymes; Nucleic acids used in co-suppression or gene silencing
- C12N15/1135—Non-coding nucleic acids modulating the expression of genes, e.g. antisense oligonucleotides; Antisense DNA or RNA; Triplex- forming oligonucleotides; Catalytic nucleic acids, e.g. ribozymes; Nucleic acids used in co-suppression or gene silencing against oncogenes or tumor suppressor genes
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K31/00—Medicinal preparations containing organic active ingredients
- A61K31/70—Carbohydrates; Sugars; Derivatives thereof
- A61K31/7088—Compounds having three or more nucleosides or nucleotides
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K41/00—Medicinal preparations obtained by treating materials with wave energy or particle radiation ; Therapies using these preparations
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K45/00—Medicinal preparations containing active ingredients not provided for in groups A61K31/00 - A61K41/00
- A61K45/06—Mixtures of active ingredients without chemical characterisation, e.g. antiphlogistics and cardiaca
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P1/00—Drugs for disorders of the alimentary tract or the digestive system
- A61P1/02—Stomatological preparations, e.g. drugs for caries, aphtae, periodontitis
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P1/00—Drugs for disorders of the alimentary tract or the digestive system
- A61P1/04—Drugs for disorders of the alimentary tract or the digestive system for ulcers, gastritis or reflux esophagitis, e.g. antacids, inhibitors of acid secretion, mucosal protectants
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P1/00—Drugs for disorders of the alimentary tract or the digestive system
- A61P1/16—Drugs for disorders of the alimentary tract or the digestive system for liver or gallbladder disorders, e.g. hepatoprotective agents, cholagogues, litholytics
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P1/00—Drugs for disorders of the alimentary tract or the digestive system
- A61P1/18—Drugs for disorders of the alimentary tract or the digestive system for pancreatic disorders, e.g. pancreatic enzymes
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P11/00—Drugs for disorders of the respiratory system
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P13/00—Drugs for disorders of the urinary system
- A61P13/08—Drugs for disorders of the urinary system of the prostate
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P13/00—Drugs for disorders of the urinary system
- A61P13/10—Drugs for disorders of the urinary system of the bladder
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P15/00—Drugs for genital or sexual disorders; Contraceptives
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P17/00—Drugs for dermatological disorders
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P19/00—Drugs for skeletal disorders
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P21/00—Drugs for disorders of the muscular or neuromuscular system
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P25/00—Drugs for disorders of the nervous system
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P35/00—Antineoplastic agents
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P35/00—Antineoplastic agents
- A61P35/02—Antineoplastic agents specific for leukemia
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P43/00—Drugs for specific purposes, not provided for in groups A61P1/00-A61P41/00
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P5/00—Drugs for disorders of the endocrine system
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/11—DNA or RNA fragments; Modified forms thereof; Non-coding nucleic acids having a biological activity
- C12N15/113—Non-coding nucleic acids modulating the expression of genes, e.g. antisense oligonucleotides; Antisense DNA or RNA; Triplex- forming oligonucleotides; Catalytic nucleic acids, e.g. ribozymes; Nucleic acids used in co-suppression or gene silencing
- C12N15/1136—Non-coding nucleic acids modulating the expression of genes, e.g. antisense oligonucleotides; Antisense DNA or RNA; Triplex- forming oligonucleotides; Catalytic nucleic acids, e.g. ribozymes; Nucleic acids used in co-suppression or gene silencing against growth factors, growth regulators, cytokines, lymphokines or hormones
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/11—DNA or RNA fragments; Modified forms thereof; Non-coding nucleic acids having a biological activity
- C12N15/113—Non-coding nucleic acids modulating the expression of genes, e.g. antisense oligonucleotides; Antisense DNA or RNA; Triplex- forming oligonucleotides; Catalytic nucleic acids, e.g. ribozymes; Nucleic acids used in co-suppression or gene silencing
- C12N15/1138—Non-coding nucleic acids modulating the expression of genes, e.g. antisense oligonucleotides; Antisense DNA or RNA; Triplex- forming oligonucleotides; Catalytic nucleic acids, e.g. ribozymes; Nucleic acids used in co-suppression or gene silencing against receptors or cell surface proteins
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K48/00—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2310/00—Structure or type of the nucleic acid
- C12N2310/10—Type of nucleic acid
- C12N2310/11—Antisense
- C12N2310/111—Antisense spanning the whole gene, or a large part of it
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2310/00—Structure or type of the nucleic acid
- C12N2310/10—Type of nucleic acid
- C12N2310/14—Type of nucleic acid interfering nucleic acids [NA]
- C12N2310/141—MicroRNAs, miRNAs
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Engineering & Computer Science (AREA)
- Chemical & Material Sciences (AREA)
- General Health & Medical Sciences (AREA)
- Organic Chemistry (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Genetics & Genomics (AREA)
- Medicinal Chemistry (AREA)
- Pharmacology & Pharmacy (AREA)
- Animal Behavior & Ethology (AREA)
- Public Health (AREA)
- Veterinary Medicine (AREA)
- Biomedical Technology (AREA)
- General Chemical & Material Sciences (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Molecular Biology (AREA)
- Biotechnology (AREA)
- Zoology (AREA)
- Wood Science & Technology (AREA)
- General Engineering & Computer Science (AREA)
- Biophysics (AREA)
- Epidemiology (AREA)
- Biochemistry (AREA)
- Microbiology (AREA)
- Plant Pathology (AREA)
- Physics & Mathematics (AREA)
- Endocrinology (AREA)
- Oncology (AREA)
- Urology & Nephrology (AREA)
- Neurology (AREA)
- Physical Education & Sports Medicine (AREA)
- Pulmonology (AREA)
- Diabetes (AREA)
- Reproductive Health (AREA)
- Hematology (AREA)
- Gastroenterology & Hepatology (AREA)
- Dermatology (AREA)
- Orthopedic Medicine & Surgery (AREA)
Abstract
【解決手段】本明細書中に記載される方法および組成物に使用するのに適切な核酸としては、プリmiRNA、プレmiRNA、成熟miRNA、成熟miRNAの生物学的活性を保持するフラグメントまたはそれらの改変体および、プリmiRNA、プレmiRNA、成熟miRNA、それらのフラグメントもしくは改変体をコードするDNA、またはmiRNAの調節エレメントが挙げられるが、これらに限定されない。核酸を含む組成物は、癌の少なくとも1つの症状もしくは発現の処置または予防を必要とする患者に投与される。1つの実施形態において、その組成物は、1種以上のオンコジーンの遺伝子発現を阻害するのに有効な量で投与される。癌の少なくとも1つの症状もしくは発現の処置または予防のための方法もまた、記載される。
【選択図】なし
Description
本願は、Frank J.Slack、Steven M.Johnson、Kristy L.Reinert、およびHelge Grosshansによる発明の名称「Regulation of Oncogenes by MicroRNAs」である米国特許出願第60/606,855号(2004年9月4日出願)に基づく優先権を主張する。
連邦政府は、National Institute of HealthからFrank J.Slackに対する助成金番号1R01GM062594−01A1および助成金番号1R01GM064701−01の効力により、本発明において特定の権利を有する。
癌は、異常細胞の制御されていない増殖および拡散によって特徴付けられる疾患の群である。癌は、外部要因(タバコ、化学物質、放射線、および感染生物体)および内部要因(遺伝的変異、ホルモン、免疫の状態、およびDNAの損傷)の両方によって引き起こされる。これらの因子は、同時か、または連続的に作用して、発癌をイニシエート(initiate)し、そして/または促進する。癌は、米国において、4人に1人の死因であり、そして85歳未満の人々の死の主な原因である。米国において、全男性の約半分および全女性の少なくとも3分の1が、その人生の間に癌を発症する。現在、数百万人の人々が、癌と共に生きているか、または癌を有している。より早期に癌が発見され、そして処置が開始されるほど、長い年数を生きる可能性が高くなる。
細胞の分化および発達を制御する遺伝子は、ヒトの癌において頻繁に変異される。これらとしては、RAS、c−mycおよびbcl−2のようなオンコジーンが挙げられるが、これらに限定されない。天然に存在するマイクロRNA(特に、let−7)は、ヒトにおいてこれらのオンコジーンをダウンレギュレートすることが見出されている。let−7遺伝子のいくつかは、特定の癌において欠失される染色体領域に位置する。従って、これらの特定のマイクロRNAをアップレギュレートすること、または類似の薬学的化合物を外因的に提供することは、これらのオンコジーンの活性化または過剰発現によって生じる腫瘍に対する、有効な癌療法であるはずである。プリmiRNA、プレmiRNA、成熟miRNA、成熟miRNAの生物学的活性を保持するフラグメントまたはそれらの改変体および、プリmiRNA、プレmiRNA、成熟miRNA、それらのフラグメントもしくは改変体をコードするDNA、またはmiRNAの調節エレメントを含むmiRNAの核酸(特に明記しない限り、まとめて「miRNA」と称される)、が、記載される。1つの実施形態において、上記miRNAの大きさの範囲は、21ヌクレオチド〜170ヌクレオチドであり得るが、2000ヌクレオチドまでのmiRNAが、利用され得る。好ましい実施形態において、上記miRNAの大きさの範囲は、70ヌクレオチド長〜170ヌクレオチド長である。別の好ましい実施形態において、21ヌクレオチド長〜25ヌクレオチド長の成熟miRNAが、使用され得る。
例えば、本願発明は以下の項目を提供する。
(項目1)
一種以上のオンコジーンの発現を阻害するための方法であって、以下:
miRNAを提供する工程、または該miRNAの発現を増加させる工程を包含し、該miRNAは、生物体の細胞中のオンコジーンに結合し、そして該オンコジーンの発現を示す、
工程を包含する、方法。
(項目2)
上記miRNAは、プリmiRNA、プレmiRNA、成熟miRNA、およびそれらのフラグメントまたはそれらの改変体からなる群より選択される、項目1に記載の方法。
(項目3)
前記miRNAは、核酸によってコードされる、項目2に記載の方法。
(項目4)
上記核酸は、ベクター上に配置される、項目3に記載の方法。
(項目5)
上記ベクターは、プラスミド、コスミド、ファージミド、ウイルス、およびウイルスの供給源または細菌の供給源に由来する他のビヒクルからなる群により選択される、項目4に記載の方法。
(項目6)
前記ベクターは、1つ以上のインビボ発現エレメントをさらに含む、項目4に記載の方法。
(項目7)
前記インビボ発現エレメントは、プロモーター、エンハンサー、およびそれらの組み合わせからなる群より選択される、項目6に記載の方法。
(項目8)
前記miRNAは、21ヌクレオチド長〜170ヌクレオチド長である、項目1に記載の方法。
(項目9)
前記miRNAは、21ヌクレオチド長〜25ヌクレオチド長である、項目8に記載の方法。
(項目10)
前記miRNAは、癌の処置もしくは予防のために患者に投与されるか、または該miRNAは、癌の処置もしくは予防のために発現が、該患者の細胞において増加される、項目1に記載の方法。
(項目11)
前記癌は、肺癌、膵臓癌、皮膚癌、血液学的新生物、乳癌、脳の癌、結腸癌、濾胞性リンパ腫、膀胱癌、子宮頚癌、子宮内膜癌、食道癌、胃癌、頭部および頚部の癌、多発性骨髄腫、肝臓癌、リンパ腫、口腔癌、骨肉腫、卵巣癌、前立腺癌、精巣癌、および甲状腺癌からなる群より選択される、項目10に記載の方法。
(項目12)
前記オンコジーンは、NRAS、KRAS、HRAS、MYC、MYCL1、MYCN、BCL2、BCL2L1、BCL2L2、TERT、VEGF、EGF、EGFR、ERBB3、GRB2、RAF1、ARAF、MAP2K2、MAPK1、MAPK3、MET、KIT、TP73L(AIX)、CCND1、CDK4、MDM2、FES、FURTN、INSL3、CSFIR、MYBL2、MYB、PIK3CD、PIK3C2B、PIK3CG、PIK3R5、AKT1、HLIN−41、VDR、PXR、FOXA1、FOXA2、ASH1L、ARID1B、GR、GLI2、14−3−3ζ、MO25、SMG1、FRAP1、PER2およびAKT3からなる群より選択される、項目1に記載の方法。
(項目13)
上記miRNAは、eor−1、had−1、let−60、lin−3、lin−9、lin−11、lin−36、lin−39、lin−45、mpk−1、およびsem−5からなる群より選択されるオンコジーン上の部位に結合する、項目12に記載の方法。
(項目14)
上記患者は、外科手術、化学療法、放射線療法、温熱療法、免疫療法、ホルモン療法、およびレーザー療法からなる群より選択される1つ以上の癌療法を受容する、項目10に記載の方法。
(項目15)
上記生物体は、ヒトである、項目1に記載の方法。
(項目16)
miRNAに対する癌の感受性を決定するための方法であって、該方法は、miRNAを提供する工程、または該miRNAの発現を増加させる工程であって、該miRNAは、該癌性細胞もしくは形質転換細胞または癌性細胞もしくは形質転換細胞を有する生物体中のオンコジーンに結合する工程、および該オンコジーンの発現が阻害される場合に、癌性細胞もしくは形質転換細胞の増殖または生存が阻害されるか否かを決定する工程を包含する、方法。
(項目17)
1種以上のオンコジーンの発現を阻害するための治療的組成物であって、該組成物は、生物体中の形質転換細胞または癌性細胞におけるオンコジーンの発現に結合し、そして該オンコジーンの発現を示すmiRNAの有効な量、および薬学的に受容可能なキャリアを含有する、組成物。
(項目18)
上記miRNAは、プリmiRNA、プレmiRNA、成熟miRNA、およびそれらのフラグメントまたはそれらの改変体からなる群より選択される、項目17に記載の組成物。
(項目19)
上記miRNAは、プラスミド、コスミド、ファージミド、ウイルス、および他のウイルスの供給源または細菌の供給源からなる群より選択されるベクター上に配置される核酸によってコードされ、該核酸は、プロモーター、エンハンサー、およびそれらの組み合わせからなる群より選択される一種以上のインビボ発現エレメントを含む、項目17に記載の組成物。
(項目20)
前記miRNAは、21ヌクレオチド長〜170ヌクレオチド長である、項目17に記載の組成物。
(項目21)
前記miRNAは、21ヌクレオチド長〜25ヌクレオチド長である、項目20に記載の組成物。
(項目22)
前記癌は、肺癌、膵臓癌、皮膚癌、血液学的新生物、乳癌、脳の癌、結腸癌、濾胞性リンパ腫、膀胱癌、子宮頚癌、子宮内膜癌、食道癌、胃癌、頭部および頚部の癌、多発性骨髄腫、肝臓癌、リンパ腫、口腔癌、骨肉腫、卵巣癌、前立腺癌、精巣癌、および甲状腺癌からなる群より選択される、項目17に記載の組成物。
(項目23)
上記オンコジーンは、NRAS、KRAS、HRAS、MYC、MYCL1、MYCN、BCL2、BCL2L1、BCL2L2、TERT、VEGF、EGF、EGFR、ERBB3、GRB2、RAF1、ARAF、MAP2K2、MAPK1、MAPK3、MET、KIT、TP73L(AIX)、CCND1、CDK4、MDM2、FES、FURTN、INSL3、CSFIR、MYBL2、MYB、PIK3CD、PIK3C2B、PIK3CG、PIK3R5、AKT1、HLIN−41、VDR、PXR、FOXA1、FOXA2、ASH1L、ARID1B、GR、GLI2、14−3−3ζ、MO25、SMG1、FRAP1、PER2およびAKT3からなる群より選択される、項目17に記載の組成物。
(項目24)
上記miRNAは、eor−1、had−1、let−60、lin−3、lin−9、lin−11、lin−36、lin−39、lin−45、mpk−1、およびsem−5からなる群より選択されるオンコジーン上の部位に結合する、項目23に記載の組成物。
(定義)
本明細書中で使用される場合、用語「核酸」とは、複数のヌクレオチド(すなわち、リン酸基および置換ピリミジン(例えば、シトシン(C)、チミジン(T)またはウラシル(U))または置換プリン(例えば、アデニン(A)またはグアニン(G))のいずれかである交換可能な有機塩基に連結される糖(例えば、リボースまたはデオキシリボース)を含む分子)をいう。この用語はまた、ポリヌクレオシド(すなわち、ポリヌクレオチドからリン酸を引いたもの)および任意の他の有機塩基含有ポリマーを含むものとする。プリンおよびピリミジンとしては、アデニン、シトシン、グアニン、チミジン、イノシン、5−メチルシトシン、2−アミノプリン、2−アミノ−6−クロロプリン、2,6−ジアミノプリン、ヒポキサンチン、ならびに他の天然に存在する核酸塩基(nucleobase)および天然に存在しない核酸塩基、置換および非置換の芳香族部分が挙げられるが、これらに限定されない。他のこのような改変は、当業者に周知である。従って、用語「核酸」はまた、塩基および/もしくは糖におけるような置換または改変を有する核酸を包含する。
細胞の分化および発達を制御する遺伝子は、ヒトの癌において頻繁に変異される。これらとしては、RAS、c−mycおよびbcl−2のようなオンコジーンが挙げられるが、これらに限定されない。天然に存在するマイクロRNA(特に、let−7)は、ヒトにおいてこれらのオンコジーンをダウンレギュレートすることが見出されている。let−7遺伝子のいくつかは、特定の癌において欠失される染色体領域中に位置する。従って、これらの特定のマイクロRNAをアップレギュレートすること、または類似の薬学的化合物を外因的に提供することは、これらのオンコジーンの活性化または過剰発現によって生じる腫瘍に対する、有効な癌療法であるはずである。

異なる研究室からの最近の研究は、ヒトの癌におけるmiRNAの役割を示す(McManus、Seminars in Cancer Biology、(2003)、13:253−258)。ヒトのmiRNA(mir−15およびmir−16)は、成人の白血病、B細胞慢性リンパ性白血病の一般的な形態を有する患者において、優先的に欠失されるかまたはダウンレギュレートされる(Calinら、Proc Natl Acad Sci USA、(2002)、99(24):15524−9)。この研究は、miRNAが癌抑制遺伝子として機能し得ることを示唆する。mir−155 miRNAをコードするbic遺伝子座は、c−mycと協同的に機能し、そしておそらくプロトオンコジーンとして作用してB細胞リンパ腫を誘導する(Haasch,D.ら、Cell Immunol、(2002)、217(1−2):78−86)。miR142は、慢性リンパ性白血病において腫瘍抑制因子として作用する(Calin,G.A.ら、Proc Natl Acad Sci USA、(2002)、99(24):15524−9;Lagos−Quintana,M.ら、Curr Biol、(2002)、12(9):735−9)。His−1は、B細胞リンパ腫においてオンコジーンとして作用する(Haasch,D.ら、(2002);Lagos−Quintana,M.ら、(2002);Lagos−Quintana,M.ら、Science、(2001)、294(5543):853−8;Liら、Am J Pathol、(1997)、150:1297−305)。mir−142遺伝子座へのmycの転座は、B細胞リンパ腫を引き起こす(Lagos−Quintana,M.ら、(2002);Gauwerky,C.E.ら、Proc Natl Acad Sci USA、1989.86(22):8867−71)。mir−143およびmir−145は、結腸直腸癌において十分に発現されない(Michael、M.Z.ら、Mol Cancer Res、(2003)、1(12):882−91)。mir−17遺伝子座、mir−18遺伝子座、mir−19遺伝子座、mir−20遺伝子座の過剰発現は、マウスモデルにおいてリンパ腫を引き起こし得、そしてMYCによってアップレギュレートされる(He,L.ら、Nature、(2005)、435(7043):828−33;O’Donnell,K.A.ら、Nature、(2005)、435(7043):839−43)。
Cell、(2003)、4(5):625−37;ならびにOlsen,P.H.およびV.Ambros、Dev Biol、(1999)、216(2):671−80)。lin−41 3’UTRからのlet−7 miRNA相補部位(LCS)の欠失(図2)は、L4段階および成虫段階の間の、lin−41の正常なダウンレギュレーションの抑止を示し、そして最近の研究は、これらの相補部位が、単独で、lin−41の調節に十分であることを示した(Reinhart,B.ら、Nature、(2000)、403:901−906;Slack,F.J.ら、Molec.Cell、(2000)、5:659−669;Vella,M.C.ら、Genes Dev、(2004)、18(2):132−7)。
Shin−Yi,J.ら、Dev.Cell、2003、(4):1−20)およびlet−60(C.elegansのRASオンコジーンホモログが挙げられる(実施例1を参照のこと)。表2に示されるように、let−60/RASは、その3’UTR中に複数のlet−7相補(complimentary)部位を含み、そしてlet−60(lf)は、let−7変異を抑制する。let−60/RASは、C.elegansの陰門形成においてその役割が最も理解され、そしてlet−60/RASの3’UTRは、絶対的にlet−60/ras活性を必要とする陰門前駆細胞(VPC)(一次誘導細胞、1°細胞またはP6.p細胞)だけにlet−60/RAS発現を制限するのに十分である。正常な動物において、let−7ファミリーメンバー(mir−84)は、一次誘導細胞を除く全てのVPCにおいて発現され、そしてこれらの細胞におけるlet−60/ras発現を抑制する。
ヒトのオンコジーン調節する天然に存在するマイクロRNA(プリmiRNA、プレmiRNA、成熟miRNA、または成熟miRNAの生物学的活性を保持するそれらのフラグメントもしくは改変体をコードするDNA、それらのフラグメントもしくは改変体、およびプリmiRNA、プレmiRNA、成熟miRNA、またはそれらのフラグメントもしくは改変体をコードするDNAあるいは上記miRNAの調節エレメント)が、同定されている。上記miRNAの大きさは、代表的に、21ヌクレオチド〜170ヌクレオチドであるが、2000ヌクレオチドまでのヌクレオチドが、利用され得る。好ましい実施形態において、上記プレmiRNAの大きさの範囲は、70ヌクレオチド長と170ヌクレオチド長との間であり、成熟miRNAは、21ヌクレオチド長と25ヌクレオチド長との間である。
(一般的技術)
分子生物学的技術を記載する一般的な教科書としては、Sambrook、Molecular Cloning:a Laboratory Manual(第2版)、第1巻〜第3巻、Cold Spring Harbor Laboratory、(1989);Current Protocols in Molecular Biology、Ausubel編、John Wiley & Sons,Inc.、New York(1997);Laboratory Techniques in Biochemistry and Molecular Biology:Hybridization With Nucleic Acid Probes、Part I.Theory and Nucleic Acid Preparation、P.Tijssen編、Elsevier,N.Y.(1993);BergerおよびKimmel、Guide to Molecular Cloning Techniques Methods in Enzymology volume 152 Academic Press,Inc.、San Diego、Califが挙げられる。これらの教科書は、例えば、let−7または任意の他のmiRNA活性をコードする遺伝子の生成および発現に関する、変異誘発、ベクターの使用、プロモーター、ならびに多くの他の関係のある話題を記載する。核酸、遺伝子の単離、精製および操作のための技術(例えば、ライブラリーの生成、発現ベクター中へのサブクローニング、プローブの標識、ならびにDNAハイブリダイゼーションもまた、上記の教科書において記載され、そしてそれらは、当業者に周知である。
nucleic acid probe assays」、(Elsevier,N.Y.)、およびAusubel、前出に見出される。HamesおよびHiggins、(1995)、Gene Probes 1 IRL Press at Oxford
University Press、Oxford、England、(HamesおよびHiggins 1)ならびにHamesおよびHiggins、(1995)、Gene Probes 2 IRL Press at Oxford University Press、Oxford、England(HamesおよびHiggins
2)は、オリゴヌクレオチドを含むDNAおよびRNAの合成、標識化、検出ならびに定量化についての詳細を提供する。
1つの実施形態において、miRNA分子をコードする上記核酸は、ベクター上にある。これらのベクターは、成熟マイクロRNAおよびインビボ発現エレメントをコードする配列を含む。好ましい実施形態において、これらのベクターは、上記プレmiRNAが発現され、そしてインビボで成熟miRNAへとプロセシングされるように、プレmiRNAおよびインビボ発現エレメントをコードする配列を含む。別の実施形態において、これらのベクターは、上記プリmiRNA遺伝子およびインビボ発現エレメントをコードする配列を含む。この実施形態において、一次転写物は、最初にプロセシングされて、ステム−ループ前駆体miRNA分子を生成する。次いで上記ステム−ループ前駆体はプロセシングされて、成熟マイクロRNAを生成する。
「インビボ発現エレメント」は、上記マイクロRNAを生成するために上記核酸の効率的な発現を容易にする、任意の調節ヌクレオチド配列(例えば、プロモーター配列またはプロモーターとエンハンサーとの組み合わせ)である。上記インビボ発現エレメントは、例えば、哺乳動物プロモーターまたはウイルスプロモーター(例えば、構成的プロモーターもしくは誘導性プロモーターまたは組織特異的プロモーター)であり得る。これらプロモーターの例は、当業者に周知である。構成的哺乳動物プロモーターとしては、ポリメラーゼプロモーターおよび以下の遺伝子についてのプロモーターが挙げられるが、これらに限定されない:ヒポキサンチンホスホリボシルトランスフェラーゼ(HPTR)、アデノシンデアミナーゼ、ピルビン酸キナーゼ、およびβ−アクチン。真核生物細胞において構成的に機能する例示的なウイルスプロモーターとしては、シミアンウイルス、パピローマウイルス、アデノウイルス、ヒト免疫不全ウイルス(HIV)、ラウス肉腫ウイルス、サイトメガロウイルス、モロニー白血病ウイルスおよび他のレトロウイルスの長い末端反復配列(LTR)由来のプロモーター、ならびに単純ヘルペスウイルスのチミジンキナーゼプロモーターが挙げられるが、これらに限定されない。他の構成的プロモーターは、当業者に公知である。誘導性プロモーターは、誘導剤の存在下において発現され、そして上記誘導性プロモーターとしては、金属誘導性プロモーターおよびステロイド調節型プロモーターが挙げられるが、これらに限定されない。例えば、メタロチオネインプロモーターは、特定の金属イオンの存在下において転写を促進するように誘導される。他の誘導性プロモーターは、当業者に周知である。
上記miRNAは、当業者に周知である種々の技術によって、細胞または組織から単離されても、組換え的に生成されても、インビトロで合成されてもよい。
上記組成物は、癌の少なくとも1つの症状もしくは発現(疾患が、症状の非存在下で発生/進行し得ることに起因する)の処置または予防を必要とする患者に投与される。オンコジーンの異常な発現は、癌の特徴である。好ましい実施形態において、上記癌は、肺癌である。1つの実施形態において、上記組成物は、1種以上のオンコジーンの発現を阻害するのに有効な量で投与される。好ましい実施形態において、これらの組成物は、RAS、MYC、および/またはBCL−2の発現を阻害するのに有効な量で投与される。
(投与の方法)
一般的に、核酸を投与する方法は、当該分野において周知である。特に、現在使用している処方物に従って、核酸治療薬について既に使用されている投与の経路は、上に記載される核酸についての投与および処方物の好ましい経路を提供する。
癌の処置は、腫瘍細胞増殖を阻害し、新脈管形成(腫瘍の増殖を補助するのに必要である新しい血管の増殖)を阻害し、そして/または腫瘍細胞の移動度または侵襲性を減少させることで転移を制止することによって腫瘍の後退を促がす。本明細書中に記載される治療的処方物は、以下を含む成人および小児の腫瘍学において有効であり得る:固形腫瘍/悪性腫瘍、局所で進行した腫瘍、ヒト軟部組織肉腫、リンパ行性転移を含む転移性癌、多発性骨髄腫、急性白血病および慢性白血病、ならびにリンパ腫を含む血液細胞の悪性腫瘍、口の癌、喉頭癌および甲状腺癌を含む頭部および頚部の癌、小細胞癌および非小細胞癌を含む肺癌、小細胞癌および腺管癌を含む乳癌、食道癌、胃癌、結腸癌、結腸直腸癌および結腸直腸の新形成に関するポリープを含む胃腸癌、膵臓癌、肝臓癌、膀胱癌および前立腺癌を含む泌尿器の癌、卵巣癌、子宮癌(子宮内膜癌を含む)、および卵胞における固形腫瘍を含む女性生殖管の悪性腫瘍、腎細胞癌を含む腎臓癌、内因性の脳腫瘍を含む脳の癌、神経芽細胞腫、星状細胞の脳腫瘍、神経膠腫、中枢神経系における転移性腫瘍細胞の侵襲、骨腫を含む骨癌、悪性黒色腫を含む皮膚癌、ヒトの皮膚ケラチノサイトの腫瘍の進行、有棘細胞癌、基底細胞癌、血管周囲細胞腫およびカポジ肉腫。治療的処方物は、単独か、または補助の癌療法(例えば、外科手術、化学療法、放射線療法、温熱療法、免疫療法、ホルモン療法、およびレーザー療法)と組み合わせて、治療的に有効な投薬量で投与されて、例えば、腫瘍の大きさを減少させるか、腫瘍増殖速度を遅くするか、腫瘍の細胞増殖を減少させるか、癌細胞の死を促進するか、新脈管形成を阻害するか、転移を阻害するか、あるいは他の方法で必ずしも癌を根絶せずに全体的な臨床状態を改善する有益な効果を提供し得る。
C.elegansのlet−7、mir−48、mir−84およびmir−241は、let−7ファミリーを構成する4種の発生学的に調節されたmiRNAをコードする(Lauら、(2001)、Science、294、858−862;Limら、(2003)、Genes Dev、77、991−1008;Reinhartら、(2000)、Nature、403、901−906)。このファミリーは、その成熟miRNAの5’末端における特定の保存を伴う高い配列同一性を提示する(図10A、図10B)。C.elegansのlet−7ファミリーmiRNA(mir−84)は、陰門形成(RAS/MAPキナーゼシグナル伝達を分析するためのモデル)に関与する(WangおよびSternberg、(2001)、Curr Top Dev Biol
51、189−220)。C.elegansのlet−60/RASは、上記let−7ファミリーのメンバーによって調節され、let−7およびmir−84は、let−60/RASの3’UTRにおける複数の部位と相補的である。let−7およびmir−84は、それぞれ、皮下組織および陰門においてlet−60/RASについて逆の様式で発現される。
プラスミド構築。PSJ840(mir−84::gfp)を、プライマーMIR84UPおよびMIR84DN(全てのプライマー配列は必要な際に入手可能である)を用いたポリメラーゼ連鎖反応(PCR)使用して、N2ゲノムDNA由来の成熟mir−84配列の上流の2.2kbのゲノム配列(塩基対−2201〜−9)を増幅し、そしてSmaI部位およびAgeI部位を、それぞれ5’末端および3’末端に付加することによって作製した。この産物を、SmaIおよびAgeIによって消化し、次いでSmaIおよびAgeIによって消化したpPD95.70ベクターにクローニングした。mir−84の上流のDNAは、let−7の上流のDNAにも見出される種々の配列エレメントを含んだ。PSJo84(mir−84(+++))を、プライマーMIR84UPおよびMIR84DN2を用いたPCRを使用して、N2ゲノムDNA由来の上記mir−84配列自体を含む成熟mir−84配列の上流および下流の3.0kbのゲノム配列(塩基対−2201〜+792)を増幅し、そしてSmaI部位を5’末端および3’末端の両方に付加することによって作製した。この産物を、製造業者(Invitrogen)によって記載される通り、TOPO TA Cloning Kitを使用してpCR4−TOPOベクターに連結した。空のTOPOコントロールベクターを、EcoRIによってPSJo84を消化し、4kbのベクターバンドを抽出し、そしてそれを自己連結させることによって作製した。miR−84欠失プラスミド(o84Δ84(Δmir−84(+++)))を、プライマーMIR84UPと共にDEL84DNを使用し、プライマーMIR84DN2と共にDEL84UPを使用し、そしてテンプレートとしてPSJo84プラスミドを使用した2つの別個のPCR反応によって開始する、オーバーラップ伸長PCRによって作製した。2つのPCR産物を精製し(QIAGEN)、次いでプライマーMIR84UPおよびMIR84DN2を使用した最終的なPCRのためのテンプレートとして一緒に使用した。この最終産物(75ntのプレmiR84をコードする配列の欠失を除いてPSJo84と同一)を、TOPO TA Cloning Kit(Invitrogen)を使用してpCR2.1−TOPOベクターに連結し、そしてo84Δ84と称した。GFP60を、プライマー3LET60UPおよび3LET60DNを用いたPCRを使用して、N2ゲノムDNA由来のlet−60 3’UTRをコードする819bpのゲノム配列を増幅し、そしてEcoRI部位およびSpeI部位を、それぞれその5’末端および3’末端に付加することによって作製した。この産物を、EcoRIおよびSpeIによって消化し、次いでEcoRIおよびSpeIによって消化したpPD95.70ベクター(Fire Lab)にクローニングし、それによってlet−60 3’UTRによってpPD95.70において見出されるunc−54 3’UTRを置換した。次いでlet−60 3’UTRが続く緑色蛍光タンパク質遺伝子(GFP)を、プライマーBGLGFPおよび3UTRNOTを用いたPCRを使用して、このプラスミドから増幅し、そしてBglII部位およびNotI部位を、それぞれその5’末端および3’末端に付加した。このPCR産物を、BglIIおよびNotIによって消化し、そしてBglIIおよびNotIによって消化したPB255に連結して、上記let−60 3’UTRによってGFPを駆動するlin−31プロモーターおよびエンハンサーを含むプラスミドGFP60を得た。GFP54を、プライマーBGLGFPおよび3UTRNOTを用いたPCRを使用して、unc−54 3’UTRが続くgfpをpPD95.70から増幅することによって作製した。このPCR産物を、消化し、そしてBglIIおよびNotIによって消化したPB255に連結し、unc−54 3’UTRによってGFPを駆動するlin−31プロモーターおよびエンハンサーを含むプラスミドGFP54を得た。pGL3−NRAS SおよびpGL3−NRAS
Lを、IMAGE cDNAクローン(アクセッション番号AI625442)からのH.s.NRAS 3’UTRの1140bpの短い形態全体、またはH.s.ゲノムDNA由来のH.s.NRAS 3’UTR(最初の43bpを除く)の3616bpの長い形態全体を増幅し、そしてそれぞれ、プライマーSMJ100およびSMJ101またはプライマーSMJ102およびSMJ103を用いたPCRによってその末端にNheI部位を付加することによって作製した。これらの産物を、NheIによって消化し、そしてXbaIによって消化したpGL3−Control(Promega)に連結し、そしてCIPを用いて処理し、H.s.NRAS 3’UTRの短い形態全体または長い形態全体を含むRrluc発現プラスミドを得た。col−10−lacZ−let−60 3’UTRレポーター遺伝子を含むpFS1047を産生するために、let−60
3’UTR全体を、プラスミドB29(Wightman,B.、Ha,I.、およびRuvkun,G.、(1993)、Cell、75、855−862)のSacII部位およびNcoI部位にサブクローニングした。
NRAS(BC005219)。NRASは、2Kb形態および4.3Kb形態として存在することが公知である。BC005219は、1151ntのポリアデニル化3’UTRを有する短い形態を示す。2種のヒトESTクローン(Genbank BU177671およびBG388501)を配列決定して、さらなるNRAS 3’UTR配列を得た。これは、上記NRAS 3’UTRが、代替的なポリアデニル化および切断部位(最初の2491nt下流)を利用する3642ntのポリアデニル化3’UTRバージョンで存在することを示した。このバージョンは、おそらく長いNRAS形態に対応する。その配列を、アクセッション番号AY941100およびAY941101を用いて示した。
C.elegansにおけるlet−7 miRNAのlet−60/RASを含むさらなる標的。上記let−7 miRNAは、それが少なくとも2つの標的遺伝子(lin−41(Slackら、(2000)、Molec Cell、5、659−669)およびhbl−1(Abrahanteら、(2003)、Dev Cell、4、625−637;Linら、(2003)、Dev Cell、4、639−650))をダウンレギュレートする場合(シーム細胞の早発性の末端への分化を生じる変異)、C.elegansにおいて時間的に発現される(Johnsonら、(2003)、Nature、426、845−849;Pasquinelliら、(2000)、Nature、408、86−89;Reinhartら、(2000)、Nature、403、901−906)。C.elegansのシーム細胞分化におけるlet−7の役割およびヒトにおけるその潜在的な役割を十分に理解するために、let−7のさらなる標的を同定した。C.elegans遺伝子についてのコンピューターによるスクリーニングを、let−7ファミリーの3’UTRにおけるlet−7ファミリー相補部位(LCS)(Grosshans,H.ら、Dev Cell、(2005)、8(3):321−30)を用いて行った。最高スコアの遺伝子の1つは、ヒトのオンコジーンRASのC.elegansオルソログをコードするlet−60であった。8種のLCSを、確認されたLCSのような特徴(Linら、(2003)、Dev Cell、4、639−650;Reinhartら、(2000)、Nature、403、901−906;Slackら、(2000)、Molec Cell、5、659−669;Vellaら、(2004)、Genes Dev、18、132−137)を有するlet−60の3’UTRにおいて同定した(図4A)。その同定した部位の多くを、近縁の線虫C.briggsae由来のlet−60の3’UTR(Steinら、(2003)、PLoS Biol、1、E45)において見出した(図4A、図11および図12)。このことは、それらの部位が生物学的に重要であるらしいことを示唆する。さらなる3つの部位を、let−60/RASをコードする配列、およびlet−7ファミリーmiRNAも結合し得る10個の他の適合しない3’UTR部位に見出した(図11)。
elegans.、Nature、426、845−849)。let−60 3’UTRを、皮下組織に発現するcol−10プロモーターによって駆動されるEscherichia coliのlacZ遺伝子の後方に融合した。レポーター遺伝子活性がL4段階付近でダウンレギュレートされ(図5A)、ほぼ同時に、let−7がシーム細胞において発現されることを見出した(Johnsonら、(2003)、Nature、426、845−849)。対照的に、未調節のコントロール3’UTRに融合された同じレポーター遺伝子は、全ての段階において発現した(図5A)(Reinhartら、(2000)、Nature、403、901−906;Slackら、(2000)、Molec Cell、5、659−669;Vellaら、(2004)、Genes Dev、18、132−137;Wightmanら、(1993)、Cell、75、855−862)。ダウンレギュレーションがlet−7(n2853)変異体において失敗した(図5B)ことに起因して、let−60 3’UTRによって指揮されるレポーターのダウンレギュレーションが野生型let−7遺伝子に依存することを見出した。従って、複数の傾向の証拠は、let−60がlet−7によって負に調節されることを強力に示唆する。第1に、let−60 3’UTRは、let−7と相補的な複数のエレメントを含み;第2に、let−60 3’UTRは、let−7依存的な様式でレポーター遺伝子のダウンレギュレーションを指揮し;第3に、このダウンレギュレーションは、上記皮下組織におけるlet−7のアップレギュレーションと相反的であり;そして最後に、let−60の機能喪失型は、let−7致死表現型を部分的に抑制する。
USA、99、15524−15529;Calinら、(2004)、Proc Natl Acad Sci USA、101、2999−3004;Michaelら、(2003)、Mol Cancer Res、1、882−891;Tamら、(2002)、J Virol、76、4275−4286)、そして3種の最もよく認識されれいるmiRNA、lin−4(Leeら、(1993)、Cell、75、843−854)、let−7(Reinhartら、(2000)、Nature、403、901−906)およびbantam(Brenneckeら、(2003)、Cell、113、25−36)の全ては、細胞増殖および細胞分化を調節する。let−7およびmir−84の最も近縁のヒトホモログは、H.s.let−7ファミリーmiRNA(Lagos−Quintanaら、(2002)、Curr Biol、12、735−739;Pasquinelliら、(2000)、Nature、408、86−89)である。let−60/RASは、ヒトHRAS、ヒトKRAS、およびヒトNRAS(肺癌を含むヒトの癌において一般的に変異される(MalumbresおよびBarbacid、(2003)、Nat Rev Cancer、3、459−465))のC.elegansオルソログである(図13A〜図13B)。3種全てのヒトのRAS 3’UTRが、確認されたC.elegansのLCSの特徴を有する、複数の推定let−7相補部位を含むことを見出した(図4B〜図4D)。これらの多くは、げっ歯類、両生類および魚類において保存され(図14および図15)、このことは、機能的な関連性を示唆する。ヒトのRAS 3’UTRにおける推定LCSの存在は、哺乳動物のlet−7ファミリーメンバーが、let−7およびmir−84がC.elegansにおいてlet−60/RASを調節するのと同様の様式で、ヒトRASを調節し得ることを示す。
USA、101、2999−3004)。
let−7およびmir−125の両方、lin−4ホモログが、肺および脳における顕著な発現と共に、成人の種々の組織において発現されることを見出した。興味深いことに、それらの両方は、膵臓および精巣において低いレベルで発現される。過去の研究は、C.elegansのlin−4 miRNAおよびlet−7 miRNAが、時間的に発現されることを示している(Reinhart,B.ら、(2000)、403:901−906ならびにFeinbaum,R.およびV.Ambros、(1999)、Dev Biol、210(l):87−95)。同様に、これらのmiRNAの哺乳動物ホモログもまた、マウスの発生の間に時間的に発現されることが示されている。ノーザンブロットは、let−7およびmir−125が、非常に類似した発現を有することを示す。それらの両方は、約E9.5日目で発現し始めた。興味深いことに、これは、肺の器官形成の時期、および他の主要な器官が発生し始めるときとほぼ一致する。
トランスフェクション(抗let−7分子を用いた)を介したA549肺癌細胞におけるlet−7機能の阻害は、A549肺癌細胞の細胞分裂の増加を引き起こし(図18A)、一方で、let−7過剰発現(トランスフェクトしたプレlet−7による)は、A549の細胞数の減少を引き起こした(図18B)。これらの結果は、let−7の腫瘍を抑制する活性と一致する。さらに、let−7過剰発現の表現型は、MYCのダウンレギュレーションによってもたらされる表現型と共通し(図18A)、このことは、細胞増殖に対するlet−7の効果もまた、MYCの抑制を介し得ることを示唆した。予備的証拠は、MYCがまた、ヒト細胞においてlet−7の直接の標的であるを示す。従って、これらの結果は、let−7が、MYCの異常な発現を有する癌において有力な治療薬であり得ることを示す。
let−7は、RASタンパク質レベル、MYCタンパク質レベルおよびBCL−2タンパク質レベルを調節し、それらの3つ全ては、主要な癌のオンコジーンである。HepG2細胞(let−7を内因的に生成しない)に対するlet−7の添加は、これらの3つの重要な腫瘍性タンパク質の全ての発現を減少させる(図20、図7A、および図8)。内因性let−7を生成するHeLa細胞は、抗let−7インヒビターによってトランスフェクトされる場合に、3つ全ての腫瘍性タンパク質の増加したレベルを発現する(図20A、図20Bおよび図7B)。これらの結果は、let−7がこれらの遺伝子の発現を抑制することを示す。複数のmir−125相補部位およびmir−143相補部位は、ヒトのKRAS 3’UTRおよびBCL2 3’UTRにおいて同定されており、そしてこれらのオンコミル(oncomir)がまた、let−7によって見られる様式と類似する様式でこれらのオンコジーンを調節し得ることが、予期される。この結果は、let−7が、増殖経路(RASおよびMYC)および生存経路(BCL2)を調節する、癌経路の優れた調節因子であることを示す。let−7はまた、テロメラーゼ経路(TERT)および新脈管形成経路(VEGF)を調節することが可能である(表1)。癌は、複数の遺伝子突然変異の結果であるので、これらの結果は、癌患者に対するlet−7の導入が、複数のオンコジーンの発現を抑制し得、そして有効な療法(事実上、1つの薬物のカクテル)を提供し得ることを示す。
Claims (1)
- 本願明細書に記載された発明。
Applications Claiming Priority (2)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US60685504P | 2004-09-02 | 2004-09-02 | |
| US60/606,855 | 2004-09-02 |
Related Parent Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2007530400A Division JP2008511678A (ja) | 2004-09-02 | 2005-09-02 | マイクロrnaによるオンコジーンの調節 |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2012105669A true JP2012105669A (ja) | 2012-06-07 |
Family
ID=36036868
Family Applications (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2007530400A Pending JP2008511678A (ja) | 2004-09-02 | 2005-09-02 | マイクロrnaによるオンコジーンの調節 |
| JP2012039065A Pending JP2012105669A (ja) | 2004-09-02 | 2012-02-24 | マイクロrnaによるオンコジーンの調節 |
Family Applications Before (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2007530400A Pending JP2008511678A (ja) | 2004-09-02 | 2005-09-02 | マイクロrnaによるオンコジーンの調節 |
Country Status (7)
| Country | Link |
|---|---|
| US (3) | US7893034B2 (ja) |
| EP (4) | EP2338994B1 (ja) |
| JP (2) | JP2008511678A (ja) |
| AU (2) | AU2005282731B2 (ja) |
| CA (1) | CA2583375C (ja) |
| DK (1) | DK1797183T3 (ja) |
| WO (1) | WO2006028967A2 (ja) |
Families Citing this family (85)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| EP2471924A1 (en) | 2004-05-28 | 2012-07-04 | Asuragen, INC. | Methods and compositions involving microRNA |
| DK1797183T3 (da) * | 2004-09-02 | 2012-10-01 | Univ Yale | Regulering af onkogener med mikrornas |
| ES2534300T3 (es) | 2004-11-12 | 2015-04-21 | Asuragen, Inc. | Procedimientos y composiciones que implican miARN y moléculas inhibidoras de miARN |
| WO2007016548A2 (en) * | 2005-08-01 | 2007-02-08 | The Ohio State University Research Foundation | Micro-rna-based methods and compositions for the diagnosis, prognosis and treatment of breast cancer |
| US8481505B2 (en) | 2005-09-12 | 2013-07-09 | The Ohio State University Research Foundation | Compositions and methods for the diagnosis and therapy of BCL2-associated cancers |
| US8603991B2 (en) | 2005-11-18 | 2013-12-10 | Gradalis, Inc. | Individualized cancer therapy |
| EP1951263A4 (en) * | 2005-11-21 | 2009-11-18 | Johnson & Johnson Res Pty Ltd | MULTITARGETING DISTURBING RNAS WITH TWO ACTIVE STRANDS AND DESIGN AND APPLICATION METHODS |
| EP2484782B1 (en) | 2006-01-05 | 2015-11-18 | The Ohio State University Research Foundation | MicroRNA-based methods and compositions for the diagnosis and treatment of solid cancers |
| WO2007081680A2 (en) | 2006-01-05 | 2007-07-19 | The Ohio State University Research Foundation | Microrna expression abnormalities in pancreatic endocrine and acinar tumors |
| AU2007205234B2 (en) | 2006-01-05 | 2012-07-12 | The Ohio State University Research Foundation | MicroRNA-based methods and compositions for the diagnosis, prognosis and treatment of lung cancer |
| ES2446362T3 (es) | 2006-03-20 | 2014-03-07 | The Ohio State University Research Foundation | Huellas de microARN durante megacariocipoyesis humana |
| WO2008002672A2 (en) | 2006-06-28 | 2008-01-03 | The Cleveland Clinic Foundation | Targets for use in diagnosis, prognosis and therapy of cancer |
| ES2425387T3 (es) | 2006-07-13 | 2013-10-15 | The Ohio State University Research Foundation | Mir-106a para diagnosticar adenocarcinoma de colon de pronóstico de supervivencia pobre |
| ES2534430T3 (es) * | 2006-08-28 | 2015-04-22 | The University Of Western Australia | Método de modulación de la expresión del receptor del factor de crecimiento epidérmico (EGFR) que implica miARN |
| US8071292B2 (en) | 2006-09-19 | 2011-12-06 | The Ohio State University Research Foundation | Leukemia diagnostic methods |
| WO2008054828A2 (en) | 2006-11-01 | 2008-05-08 | The Ohio State University Research Foundation | Microrna expression signature for predicting survival and metastases in hepatocellular carcinoma |
| US7786139B2 (en) | 2006-11-21 | 2010-08-31 | Omeros Corporation | PDE10 inhibitors and related compositions and methods |
| US20080131878A1 (en) * | 2006-12-05 | 2008-06-05 | Asuragen, Inc. | Compositions and Methods for the Detection of Small RNA |
| WO2008073919A2 (en) * | 2006-12-08 | 2008-06-19 | Asuragen, Inc. | Mir-20 regulated genes and pathways as targets for therapeutic intervention |
| EP2104737B1 (en) * | 2006-12-08 | 2013-04-10 | Asuragen, INC. | Functions and targets of let-7 micro rnas |
| JP2010516291A (ja) | 2007-01-31 | 2010-05-20 | ジ・オハイオ・ステイト・ユニバーシティ・リサーチ・ファウンデイション | 急性骨髄性白血病(aml)の診断、予後及び治療のためのマイクロrnaに基づく方法及び組成物 |
| WO2008095096A2 (en) * | 2007-01-31 | 2008-08-07 | Immune Disease Institute | Let-7 microrna and mimetics thereof as therapeutics for cancer |
| WO2008109519A2 (en) * | 2007-03-02 | 2008-09-12 | University Of South Florida | Micro-rna profiles associated with endometrial cancer development and response to cisplatin and doxorubicin chemotherapy |
| CN101827941B (zh) * | 2007-04-30 | 2014-07-16 | 俄亥俄州立大学研究基金会 | 用于区分胰腺癌与正常胰腺功能和/或慢性胰腺炎的方法 |
| US8465917B2 (en) | 2007-06-08 | 2013-06-18 | The Ohio State University Research Foundation | Methods for determining heptocellular carcinoma subtype and detecting hepatic cancer stem cells |
| US8053186B2 (en) | 2007-06-15 | 2011-11-08 | The Ohio State University Research Foundation | Oncogenic ALL-1 fusion proteins for targeting Drosha-mediated microRNA processing |
| CA2728571A1 (en) * | 2007-06-29 | 2009-01-08 | Boston Biomedical, Inc. | Bacteria-mediated gene modulation via microrna machinery |
| EP2173911B1 (en) | 2007-07-31 | 2014-06-18 | The Ohio State University Research Foundation | Methods for reverting methylation by targeting dnmt3a and dnmt3b |
| EP2653561B1 (en) | 2007-08-03 | 2016-03-02 | The Ohio State University Research Foundation | Ultraconserved regions encoding ncRNAs |
| EP3028708A1 (en) | 2007-08-22 | 2016-06-08 | The Ohio State University Research Foundation | Methods and compositions for inducing deregulation of epha7 and erk phosphorylation in human acute leukemias |
| WO2009026574A2 (en) * | 2007-08-23 | 2009-02-26 | Keren Pharmaceutical, Inc. | Immunogenic compositions and uses thereof |
| US8361714B2 (en) | 2007-09-14 | 2013-01-29 | Asuragen, Inc. | Micrornas differentially expressed in cervical cancer and uses thereof |
| EP2212440A4 (en) * | 2007-10-11 | 2011-04-06 | Univ Ohio State Res Found | METHOD AND COMPOSITIONS FOR DIAGNOSIS AND TREATMENT OF ADENOCARCINOMES OF DISHES |
| WO2009055773A2 (en) | 2007-10-26 | 2009-04-30 | The Ohio State University Research Foundation | Methods for identifying fragile histidine triad (fhit) interaction and uses thereof |
| WO2009062169A2 (en) * | 2007-11-09 | 2009-05-14 | The Board Of Regents Of The University Of Texas System | Micro-rnas of the mir-15 family modulate cardiomyocyte survival and cardiac repair |
| WO2009070805A2 (en) | 2007-12-01 | 2009-06-04 | Asuragen, Inc. | Mir-124 regulated genes and pathways as targets for therapeutic intervention |
| KR100942807B1 (ko) * | 2007-12-26 | 2010-02-18 | 재단법인서울대학교산학협력재단 | 폐암의 예방 또는 치료용 유전자 치료제 및 약제 조성물 |
| US20110081362A1 (en) * | 2008-01-31 | 2011-04-07 | The Brigham And Women's Hospital, Inc. | Treatment of cancer |
| US7998677B2 (en) * | 2008-02-26 | 2011-08-16 | Regulus Therapeutics, Inc. | MicroRNA detection |
| JP5662166B2 (ja) * | 2008-02-28 | 2015-01-28 | ジ・オハイオ・ステイト・ユニバーシティ・リサーチ・ファウンデイションThe Ohio State University Research Foundation | 胃癌の診断、予後診断及び治療のためのマイクロrnaに基づいた方法及び組成物 |
| WO2009126563A1 (en) * | 2008-04-11 | 2009-10-15 | The University Of North Carolina At Chapel Hill | Methods and compositions for the regulation of microrna processing |
| US8258111B2 (en) | 2008-05-08 | 2012-09-04 | The Johns Hopkins University | Compositions and methods related to miRNA modulation of neovascularization or angiogenesis |
| US20110107440A1 (en) * | 2008-06-04 | 2011-05-05 | Andor Pivarcsi | Skin cancer associated micrornas |
| TW201000119A (en) * | 2008-06-10 | 2010-01-01 | Oncotherapy Science Inc | MYBL2 epitope peptides and vaccines containing the same |
| WO2009152300A1 (en) | 2008-06-11 | 2009-12-17 | The Government Of The United States Of America, As Represented By The Secretary Of The Department Of Health And Human Services | Use of mir-26 family as a predictive marker of hepatocellular carcinoma and responsiveness to therapy |
| EP2314678B1 (en) | 2008-07-03 | 2017-02-15 | National University Corporation Kobe University | Micro-rna associated with rheumatoid arthritis |
| US20100092961A1 (en) | 2008-07-25 | 2010-04-15 | The Cleveland Clinic Foundation | Methods and compositions for detection of Cowden Syndrome (CS) and CS-like syndrome |
| US8729041B2 (en) | 2008-12-03 | 2014-05-20 | The Johns Hopkins University | Compositions and methods for treating hepatic neoplasia |
| US8206910B2 (en) | 2008-12-08 | 2012-06-26 | The Cleveland Clinic Foundation | Targets for use in diagnosis, prognosis and therapy of breast cancer |
| AU2010294197C9 (en) | 2009-09-10 | 2018-09-13 | Velin-Pharma A/S | Method for the preparation of micro-RNA and its therapeutic application |
| EP2504452A4 (en) | 2009-11-23 | 2014-06-11 | Univ Ohio State Res Found | MATERIALS AND METHODS FOR INFLUENCING GROWTH, MIGRATION AND INVASION OF TUMOR CELLS |
| US9051551B2 (en) * | 2009-11-24 | 2015-06-09 | The University Of Western Australia | Methods and compositions for increasing sensitivity to tyrosine kinase inhibitors |
| SG181881A1 (en) | 2009-12-23 | 2012-07-30 | Gradalis Inc | Furin-knockdown bi-functional rna |
| CN108295087B (zh) | 2009-12-23 | 2021-01-15 | 格兰达利斯有限公司 | 弗林蛋白酶敲减和gm-csf增强的(fang)癌症疫苗 |
| WO2011103345A2 (en) * | 2010-02-17 | 2011-08-25 | The Board Of Regents Of The University Of Texas System | Methods and compositions for influencing tumors using microrna-185 as a tumor suppressor |
| WO2012065049A1 (en) | 2010-11-12 | 2012-05-18 | The Ohio State University Research Foundation | Materials and methods related to microrna-21, mismatch repair, and colorectal cancer |
| CA2817982C (en) | 2010-11-15 | 2020-06-30 | The Regents Of The University Of Michigan | Controlled release mucoadhesive systems |
| JP2014509852A (ja) | 2011-03-07 | 2014-04-24 | ジ・オハイオ・ステート・ユニバーシティ | マイクロRNA−155(miR−155)により誘導される変異誘発活性は炎症および癌を結び付ける |
| US8404437B2 (en) | 2011-03-29 | 2013-03-26 | Taipei Veterans General Hospital | MicroRNA as a cancer progression predictor and its use for treating cancer |
| TWI421084B (zh) | 2011-04-01 | 2014-01-01 | Univ Kaohsiung Medical | 微小RNA let-7g的新用途 |
| US9568483B2 (en) * | 2011-04-18 | 2017-02-14 | Cornell University | Molecular subtyping, prognosis and treatment of prostate cancer |
| EE201100037A (et) * | 2011-05-16 | 2012-12-17 | Tartu Ülikool | MikroRNAde kasutamine biomarkeritena ja sihtmrkidena raku proliferatiivsete omaduste m?jutamiseks ja meetod ning komplekt nende ekspressioonitaseme tuvastamiseks |
| WO2013020044A1 (en) | 2011-08-03 | 2013-02-07 | The Charlotte-Mecklenburg Hospital Authority D/B/A Carolinas Medical Center | Treatment of fibrosis using microrna-19b |
| US9644241B2 (en) | 2011-09-13 | 2017-05-09 | Interpace Diagnostics, Llc | Methods and compositions involving miR-135B for distinguishing pancreatic cancer from benign pancreatic disease |
| US9453261B2 (en) | 2011-09-20 | 2016-09-27 | The George Washington University | Alternative splicing variants of genes associated with prostate cancer risk and survival |
| CA2852066A1 (en) | 2011-10-14 | 2013-04-18 | The Ohio State University | Methods and materials related to ovarian cancer |
| EP2788486A4 (en) * | 2011-12-10 | 2015-08-12 | Ohio State Innovation Foundation | MIARN USEFUL IN REDUCING TUMORIGENESIS OF LUNG CANCER AND ASSOCIATED COMPOSITIONS AND METHODS |
| EP2790735A4 (en) | 2011-12-13 | 2015-12-09 | Ohio State Innovation Foundation | METHODS AND COMPOSITIONS RELATING TO MIR-21 AND MIR-29A, EXOSOME INHIBITION, AND CANCER METASTASIS |
| WO2013106766A2 (en) * | 2012-01-13 | 2013-07-18 | The Research Foundation Of State University Of New York | THERAPEUTIC INDICATIONS OF miR-1291 |
| JP2015511121A (ja) | 2012-01-20 | 2015-04-16 | ジ・オハイオ・ステート・ユニバーシティ | 浸潤性および予後に関する乳がんバイオマーカーシグネチャー |
| US9163235B2 (en) | 2012-06-21 | 2015-10-20 | MiRagen Therapeutics, Inc. | Inhibitors of the miR-15 family of micro-RNAs |
| US20150252415A1 (en) * | 2012-10-15 | 2015-09-10 | The Children's Hospital Of Philadelphia | Arid1b and neuroblastoma |
| US9567641B2 (en) | 2013-07-03 | 2017-02-14 | Samsung Electronics Co., Ltd. | Combination therapy for the treatment of cancer using an anti-C-met antibody |
| PL3019619T3 (pl) | 2013-07-11 | 2022-01-10 | Modernatx, Inc. | Kompozycje zawierające syntetyczne polinkleotydy kodujące białka powiązane z crispr i syntetyczne sgrna oraz sposoby ich stosowania |
| KR101425140B1 (ko) | 2014-02-19 | 2014-08-13 | 한국과학기술원 | Lin28a 메틸화 억제제를 포함하는 줄기세포 전능화 조절용 조성물 및 lin28a 메틸화 억제제의 스크리닝 방법 |
| WO2015164818A1 (en) | 2014-04-25 | 2015-10-29 | Strike Bio, Inc. | Multiple targeted rnai for the treatment of cancers |
| EP3259577B1 (en) | 2015-02-17 | 2023-12-13 | Matrixspec Solutions Inc. | Systems, devices, and methods for detecting fertility and gender of unhatched eggs |
| WO2016149580A2 (en) * | 2015-03-19 | 2016-09-22 | The Johns Hopkins University | Sensitizing agent for cancer chemotherapy and radiation therapy and uses thereof |
| EP3302500A4 (en) * | 2015-05-26 | 2019-05-22 | Children's Medical Center Corporation | COMPOSITIONS AND METHOD FOR MODULATING ONKOGEN MIRNA |
| EP3426781B1 (en) * | 2016-03-07 | 2024-06-26 | The United States of America, as represented by The Secretary, Department of Health and Human Services | Micrornas and methods of their use |
| US11584932B2 (en) | 2016-11-01 | 2023-02-21 | The Research Foundation For The State University Of New York | 5-halouracil-modified microRNAs and their use in the treatment of cancer |
| WO2019209704A1 (en) * | 2018-04-23 | 2019-10-31 | Board Of Regents, The University Of Texas System | Microrna 584-5p compositions and methods for treating cancer |
| CA3178965A1 (en) | 2020-05-15 | 2021-11-18 | Christian COBAUGH | Messenger rna encoding cas9 for use in genome-editing systems |
| KR102367105B1 (ko) * | 2020-07-15 | 2022-02-24 | 차의과학대학교 산학협력단 | 신규한 miRNA smR-78 및 이의 용도 |
| CN120310801B (zh) * | 2025-06-18 | 2025-11-21 | 中国医学科学院药用植物研究所 | miR-108和miR-049及应用 |
Family Cites Families (43)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US3854480A (en) | 1969-04-01 | 1974-12-17 | Alza Corp | Drug-delivery system |
| US3832253A (en) | 1973-03-21 | 1974-08-27 | Baxter Laboratories Inc | Method of making an inflatable balloon catheter |
| US4675189A (en) | 1980-11-18 | 1987-06-23 | Syntex (U.S.A.) Inc. | Microencapsulation of water soluble active polypeptides |
| US4452775A (en) | 1982-12-03 | 1984-06-05 | Syntex (U.S.A.) Inc. | Cholesterol matrix delivery system for sustained release of macromolecules |
| NZ207394A (en) | 1983-03-08 | 1987-03-06 | Commw Serum Lab Commission | Detecting or determining sequence of amino acids |
| CA1200416A (en) | 1983-05-13 | 1986-02-11 | Societe Des Produits Nestle S.A. | Food process |
| US4667013A (en) | 1986-05-02 | 1987-05-19 | Union Carbide Corporation | Process for alkylene oxide polymerization |
| US5075109A (en) * | 1986-10-24 | 1991-12-24 | Southern Research Institute | Method of potentiating an immune response |
| US5133974A (en) | 1989-05-05 | 1992-07-28 | Kv Pharmaceutical Company | Extended release pharmaceutical formulations |
| WO1991006556A1 (en) | 1989-10-24 | 1991-05-16 | Gilead Sciences, Inc. | 2' modified oligonucleotides |
| SG88714A1 (en) | 1989-11-06 | 2002-05-21 | Cell Genesys Inc | Production of proteins using homologous recombination |
| DE779362T1 (de) | 1989-12-22 | 2001-04-05 | Applied Research Systems Ars Holding N.V., Curacao | DNS-Konstrukten zur Aktivierung und Veränderung der Expression von endogenen Genen |
| US5272071A (en) | 1989-12-22 | 1993-12-21 | Applied Research Systems Ars Holding N.V. | Method for the modification of the expression characteristics of an endogenous gene of a given cell line |
| US5602240A (en) | 1990-07-27 | 1997-02-11 | Ciba Geigy Ag. | Backbone modified oligonucleotide analogs |
| US5223618A (en) | 1990-08-13 | 1993-06-29 | Isis Pharmaceuticals, Inc. | 4'-desmethyl nucleoside analog compounds |
| US5610289A (en) | 1990-07-27 | 1997-03-11 | Isis Pharmaceuticals, Inc. | Backbone modified oligonucleotide analogues |
| JPH0874B2 (ja) * | 1990-07-27 | 1996-01-10 | アイシス・ファーマシューティカルス・インコーポレーテッド | 遺伝子発現を検出および変調するヌクレアーゼ耐性、ピリミジン修飾オリゴヌクレオチド |
| US5623070A (en) | 1990-07-27 | 1997-04-22 | Isis Pharmaceuticals, Inc. | Heteroatomic oligonucleoside linkages |
| US5378825A (en) | 1990-07-27 | 1995-01-03 | Isis Pharmaceuticals, Inc. | Backbone modified oligonucleotide analogs |
| JPH04167172A (ja) | 1990-10-31 | 1992-06-15 | Nec Corp | ベクトルプロセッサ |
| US5672697A (en) | 1991-02-08 | 1997-09-30 | Gilead Sciences, Inc. | Nucleoside 5'-methylene phosphonates |
| AU664847B2 (en) | 1991-05-15 | 1995-12-07 | Cell Genesys, Inc. | Genomic modifications with homologous DNA targeting |
| NZ245015A (en) | 1991-11-05 | 1995-12-21 | Transkaryotic Therapies Inc | Delivery of human growth hormone through the administration of transfected cell lines encoding human growth hormone, which are physically protected from host immune response; the transfected cells and their production |
| US5407686A (en) | 1991-11-27 | 1995-04-18 | Sidmak Laboratories, Inc. | Sustained release composition for oral administration of active ingredient |
| TW402639B (en) | 1992-12-03 | 2000-08-21 | Transkaryotic Therapies Inc | Protein production and protein delivery |
| US5489743A (en) | 1993-01-19 | 1996-02-06 | Amgen Inc. | Transgenic animal models for thrombocytopenia |
| US5858988A (en) * | 1993-02-24 | 1999-01-12 | Wang; Jui H. | Poly-substituted-phenyl-oligoribo nucleotides having enhanced stability and membrane permeability and methods of use |
| WO1994028122A1 (en) | 1993-05-26 | 1994-12-08 | Ontario Cancer Institute | Transgenic mammals lacking expression of particular cd45 isoforms |
| US5519134A (en) | 1994-01-11 | 1996-05-21 | Isis Pharmaceuticals, Inc. | Pyrrolidine-containing monomers and oligomers |
| US5705629A (en) | 1995-10-20 | 1998-01-06 | Hybridon, Inc. | Methods for H-phosphonate synthesis of mono- and oligonucleotides |
| US5736152A (en) | 1995-10-27 | 1998-04-07 | Atrix Laboratories, Inc. | Non-polymeric sustained release delivery system |
| US6919208B2 (en) | 2000-05-22 | 2005-07-19 | The Children's Hospital Of Philadelphia | Methods and compositions for enhancing the delivery of a nucleic acid to a cell |
| EP2428570B1 (en) * | 2001-09-28 | 2018-05-23 | Max-Planck-Gesellschaft zur Förderung der Wissenschaften e.V. | Microrna molecules |
| ATE546528T1 (de) * | 2002-11-13 | 2012-03-15 | Univ Jefferson | Zusammensetzungen und verfahren zur diagnose und behandlung von krebs |
| KR20050115231A (ko) * | 2003-02-10 | 2005-12-07 | 내셔날 인스티튜트 오브 어드밴스드 인더스트리얼 사이언스 앤드 테크놀로지 | 포유동물 세포의 조절 |
| US7750144B2 (en) * | 2003-06-02 | 2010-07-06 | University Of Massachusetts | Methods and compositions for enhancing the efficacy and specificity of RNA silencing |
| US8685946B2 (en) * | 2003-11-26 | 2014-04-01 | Universiy of Massachusetts | Sequence-specific inhibition of small RNA function |
| JP4120002B2 (ja) * | 2004-01-07 | 2008-07-16 | 愛知県 | miRNAを用いた癌の予後判定方法、癌の遺伝子治療ベクター及び癌治療用医薬組成物 |
| EP2471924A1 (en) * | 2004-05-28 | 2012-07-04 | Asuragen, INC. | Methods and compositions involving microRNA |
| US20060141600A1 (en) * | 2004-07-28 | 2006-06-29 | Leemor Joshua-Tor | Methods and compositions related to argonaute proteins |
| DK1797183T3 (da) * | 2004-09-02 | 2012-10-01 | Univ Yale | Regulering af onkogener med mikrornas |
| TWI545597B (zh) | 2010-08-25 | 2016-08-11 | 通路實業集團國際公司 | 多層墊片組件 |
| KR101290029B1 (ko) | 2011-01-20 | 2013-07-30 | 에스티팜 주식회사 | 시타글립틴의 중간체 제조방법 |
-
2005
- 2005-09-02 DK DK05808536.6T patent/DK1797183T3/da active
- 2005-09-02 US US11/219,379 patent/US7893034B2/en not_active Expired - Lifetime
- 2005-09-02 EP EP10178429.6A patent/EP2338994B1/en not_active Expired - Lifetime
- 2005-09-02 AU AU2005282731A patent/AU2005282731B2/en not_active Ceased
- 2005-09-02 JP JP2007530400A patent/JP2008511678A/ja active Pending
- 2005-09-02 EP EP10178401.5A patent/EP2338993B1/en not_active Expired - Lifetime
- 2005-09-02 WO PCT/US2005/031327 patent/WO2006028967A2/en not_active Ceased
- 2005-09-02 EP EP05808536A patent/EP1797183B1/en not_active Expired - Lifetime
- 2005-09-02 CA CA2583375A patent/CA2583375C/en not_active Expired - Fee Related
- 2005-09-02 EP EP10178412.2A patent/EP2298897B1/en not_active Expired - Lifetime
-
2007
- 2007-10-22 US US11/876,503 patent/US7741306B2/en not_active Expired - Lifetime
-
2010
- 2010-01-21 AU AU2010200228A patent/AU2010200228A1/en not_active Abandoned
- 2010-04-26 US US12/767,724 patent/US20110054006A1/en not_active Abandoned
-
2012
- 2012-02-24 JP JP2012039065A patent/JP2012105669A/ja active Pending
Also Published As
| Publication number | Publication date |
|---|---|
| US20080119436A1 (en) | 2008-05-22 |
| EP1797183B1 (en) | 2012-08-01 |
| EP2298897B1 (en) | 2013-08-14 |
| EP1797183A2 (en) | 2007-06-20 |
| CA2583375C (en) | 2013-01-15 |
| WO2006028967A2 (en) | 2006-03-16 |
| AU2010200228A1 (en) | 2010-02-11 |
| AU2005282731A1 (en) | 2006-03-16 |
| EP2338993A1 (en) | 2011-06-29 |
| US20110054006A1 (en) | 2011-03-03 |
| EP2338994A1 (en) | 2011-06-29 |
| US7893034B2 (en) | 2011-02-22 |
| EP2338993B1 (en) | 2013-06-12 |
| CA2583375A1 (en) | 2006-03-16 |
| DK1797183T3 (da) | 2012-10-01 |
| US7741306B2 (en) | 2010-06-22 |
| EP2298897A1 (en) | 2011-03-23 |
| EP2338994B1 (en) | 2014-03-19 |
| US20060189557A1 (en) | 2006-08-24 |
| WO2006028967A3 (en) | 2007-02-22 |
| AU2005282731B2 (en) | 2010-04-01 |
| JP2008511678A (ja) | 2008-04-17 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| AU2005282731B2 (en) | Regulation of oncogenes by microRNAs | |
| US20090220589A1 (en) | Treatment, diagnostic, and method for discovering antagonist using sparc specific mirnas | |
| JP2011519951A (ja) | miRNAによる薬物治療の増強 | |
| JP2010537640A (ja) | マイクロrna模倣剤または阻害剤としての非対称性rna二重鎖の組成物 | |
| EP2111450A2 (en) | Nucleic acid constructs and methods for specific silencing of h19 | |
| Wang et al. | Double-stranded Let-7 mimics, potential candidates for cancer gene therapy | |
| Constantin et al. | MicroRNA biogenesis and hedgehog-patched signaling cooperate to regulate an important developmental transition in granule cell development | |
| US9512425B2 (en) | Inhibiting migration of cancer cells | |
| AU2009303355B2 (en) | FAS/FASL or other death receptor targeted methods and compositions for killing tumor cells | |
| US12286629B2 (en) | Compositions and methods for treating endometriosis | |
| WO2011130464A1 (en) | Translational regulation of sparc by the micrornas mir29a, b and c | |
| WO2025253282A1 (en) | Small interfering nucletides (sioligo) for the treatment of cole-carpenter syndrome (ccs) | |
| Islam et al. | Review on: Short Hairpin Ribonucleic Acid (RNA) |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20120224 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20130128 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20130724 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20131023 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20131028 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20131122 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20131127 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20131216 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20131219 |
|
| A02 | Decision of refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A02 Effective date: 20140317 |