JP2014155506A - 改良された特性を有するフリンポリペプチド - Google Patents
改良された特性を有するフリンポリペプチド Download PDFInfo
- Publication number
- JP2014155506A JP2014155506A JP2014114538A JP2014114538A JP2014155506A JP 2014155506 A JP2014155506 A JP 2014155506A JP 2014114538 A JP2014114538 A JP 2014114538A JP 2014114538 A JP2014114538 A JP 2014114538A JP 2014155506 A JP2014155506 A JP 2014155506A
- Authority
- JP
- Japan
- Prior art keywords
- furin
- polypeptide
- amino acid
- cells
- expression
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Withdrawn
Links
Images



Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y304/00—Hydrolases acting on peptide bonds, i.e. peptidases (3.4)
- C12Y304/21—Serine endopeptidases (3.4.21)
- C12Y304/21075—Furin (3.4.21.75)
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P43/00—Drugs for specific purposes, not provided for in groups A61P1/00-A61P41/00
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/745—Blood coagulation or fibrinolysis factors
- C07K14/755—Factors VIII, e.g. factor VIII C (AHF), factor VIII Ag (VWF)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/48—Hydrolases (3) acting on peptide bonds (3.4)
- C12N9/50—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25)
- C12N9/64—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25) derived from animal tissue
- C12N9/6421—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25) derived from animal tissue from mammals
- C12N9/6424—Serine endopeptidases (3.4.21)
- C12N9/6454—Dibasic site splicing serine proteases, e.g. kexin (3.4.21.61); furin (3.4.21.75) and other proprotein convertases
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K48/00—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2799/00—Uses of viruses
- C12N2799/02—Uses of viruses as vector
- C12N2799/021—Uses of viruses as vector for the expression of a heterologous nucleic acid
Landscapes
- Health & Medical Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Organic Chemistry (AREA)
- Life Sciences & Earth Sciences (AREA)
- Engineering & Computer Science (AREA)
- Genetics & Genomics (AREA)
- Zoology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- General Health & Medical Sciences (AREA)
- Biochemistry (AREA)
- Wood Science & Technology (AREA)
- Medicinal Chemistry (AREA)
- General Engineering & Computer Science (AREA)
- Biomedical Technology (AREA)
- Molecular Biology (AREA)
- Hematology (AREA)
- Biotechnology (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Biophysics (AREA)
- Gastroenterology & Hepatology (AREA)
- Toxicology (AREA)
- Microbiology (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- General Chemical & Material Sciences (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Pharmacology & Pharmacy (AREA)
- Veterinary Medicine (AREA)
- Public Health (AREA)
- Animal Behavior & Ethology (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Peptides Or Proteins (AREA)
- Enzymes And Modification Thereof (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
Abstract
【課題】改良された特性を有するフリンポリペプチドを提供する。
【解決手段】本発明は、野生型フリンと比較して、ミドルドメイン(ホモ−B−ドメイン)と膜貫通ドメインとの間の改変されたアミノ酸配列を有するフリンポリペプチドを含み、このフリンポリペプチドは、タンパク質分解活性を保持するが、野生型フリンと比較して、低いレベルにおいて細胞培養物中に分泌される。さらに、本発明は、このようなフリンポリペプチドをコードする核酸分子、これらの核酸分子を含むベクターおよび宿主細胞、これらのフリンポリペプチドを含有する組成物、ならびにこのような組成物を産生するための方法を含む。
【選択図】なし
【解決手段】本発明は、野生型フリンと比較して、ミドルドメイン(ホモ−B−ドメイン)と膜貫通ドメインとの間の改変されたアミノ酸配列を有するフリンポリペプチドを含み、このフリンポリペプチドは、タンパク質分解活性を保持するが、野生型フリンと比較して、低いレベルにおいて細胞培養物中に分泌される。さらに、本発明は、このようなフリンポリペプチドをコードする核酸分子、これらの核酸分子を含むベクターおよび宿主細胞、これらのフリンポリペプチドを含有する組成物、ならびにこのような組成物を産生するための方法を含む。
【選択図】なし
Description
(発明の背景)
本発明は、新規なフリンポリペプチドに関する。フリンは、(対合した塩基性アミノ酸切断酵素に因んで)PACEともまた称され、哺乳動物サブチリシン様プロタンパク質転換酵素(SPCまたはPC)のファミリーに属する。これらのタンパク質は、分泌経路内において、単一か、対合しているか、または複数の塩基性コンセンサス部位において、不活性前駆体タンパク質の内部タンパク質分解(endoproteolytic)変異プロセシングに関与する(Nakayama,1997,Biochem.J.,327,625−635頁;SeidahおよびChretien,Current Opinions in Biotechnology,8,1997,602−607頁に総説されている)。このファミリーの7つの別個のメンバーが、現在までに同定されており、フリン、PC1(PC3としてもまた公知)、PC2、PACE4、PC4、PC5(PC6としてもまた公知)、PC7(またはLPC、PC8、もしくはSPC7)を含み、これらの各々が、独自の組織分布を示すが、いくつかの組織における種々のPCのオーバーラップした機能的縮重が起こり得る(Seidahら、Biochem.,1994、76、197−209頁)。
本発明は、新規なフリンポリペプチドに関する。フリンは、(対合した塩基性アミノ酸切断酵素に因んで)PACEともまた称され、哺乳動物サブチリシン様プロタンパク質転換酵素(SPCまたはPC)のファミリーに属する。これらのタンパク質は、分泌経路内において、単一か、対合しているか、または複数の塩基性コンセンサス部位において、不活性前駆体タンパク質の内部タンパク質分解(endoproteolytic)変異プロセシングに関与する(Nakayama,1997,Biochem.J.,327,625−635頁;SeidahおよびChretien,Current Opinions in Biotechnology,8,1997,602−607頁に総説されている)。このファミリーの7つの別個のメンバーが、現在までに同定されており、フリン、PC1(PC3としてもまた公知)、PC2、PACE4、PC4、PC5(PC6としてもまた公知)、PC7(またはLPC、PC8、もしくはSPC7)を含み、これらの各々が、独自の組織分布を示すが、いくつかの組織における種々のPCのオーバーラップした機能的縮重が起こり得る(Seidahら、Biochem.,1994、76、197−209頁)。
フリンは、試験された全ての哺乳動物組織および細胞株において遍在的に発現され、そして分泌経路において、広範な生物活性前駆体タンパク質(増殖因子、ホルモン、血漿タンパク質、レセプター、ウイルスエンベロープ糖タンパク質、および細菌毒素が挙げられる)をプロセシングし得る。フリンは、カルシウム依存型セリンエンドプロテアーゼであり、構造的にいくつかのドメイン(すなわち、シグナルペプチド、プロペプチド、触媒ドメイン、ミドルドメイン(middle domain)(ホモ−BまたはPドメインともまた称される)、C末端に位置するシステインリッチドメイン、膜貫通ドメインおよび細胞質テイル)に配置されている。新規に合成されたフリン前駆体の、小胞体からゴルジ区画への遷移の際に、プロペプチドは、2段階プロセシング事象において、自己触媒反応的に除かれる(Leducら、J.Biol.Chem.,267,1992,14304−14308頁;Andersonら、EMBO J.,1997,1508−1518頁)。
フリンは、トランス−ゴルジ網(TGN)に優先的に局在するが、これはまた、エンドソーム小胞を介してTGNと細胞表面との間を循環し、これによって、構成的な分泌経路を介する前駆体タンパク質の移動の間に前駆体タンパク質をプロセシングし、かつ細胞外経路に入る分子をプロセシングする。種々のプロセシング区画への、フリンの細胞分布は、その細胞質テイル内での規定された構造的特性によって、明らかに方向付けられる(Schaeferら、EMBO J.,11,1995,2424−2435頁;Voorheesら、EMBO J.,20,1995,4961−4975頁;Teuchertら、J.Biol.Chem.,274,1999,8199−8207頁)。細胞質ドメインの欠失は、原形質膜に主として位置する短縮型フリンポリペプチドを生じ、この原形質膜へは、恐らくデフォルト経路によって、短縮型フリンポリペプチドが移送され、細胞質ドメインにおける調節配列モチーフの損失に起因して、TGNへの再循環が不可能である(Molloyら、EMBO J.,13、1994、18−33頁;Schaeferら、EMBO J.,14、1995、2424−2435頁)。
C末端ドメインは、フリンの機能的活性には必ずしも必要ではないことが見出された。膜貫通ドメインおよび細胞質テイルを欠く変異体フリンは、細胞培養培地中に容易に放出され、一方で依然として重要な活性を示すことが見出された。全長組換えフリンの高レベルの発現は、膜貫通ドメインおよび細胞質テイルを欠く短縮型フリン形態(「流出(shed)」フリンと称される)の天然の分泌を生じた(Wiseら、Proc.Natl.Acad.Sci.,87、1990、9378−9382頁;RehemtullaおよびKaufman,Blood,79,1992,2349−2355頁;Vidricaireら、Biochem.Biophys.Res.Comm.,195,1993、1011−1018頁;Veyら、J.Cell.Biol.,127,1994,1829−1842頁;Preiningerら、Cytotechnol.,30,1999,1−15頁)。フリン流出(shedding)が、飽和している細胞回復機構に起因するか否か、過剰なプロテアーゼに対する宿主細胞の保護機構を表すか否か、または分泌による細胞内フリン濃度/活性を調節する天然の調節プロセスの一部であるか否かに関しては、未解決のままである。ウシ腎臓細胞のゴルジ画分からの短縮型内因性フリンの単離は、切断が、単に、過剰発現によって引き起こされる人工的な分泌プロセスではないという考えを支持し得る(Veyら、1994)。可溶性の分泌形態へのフリンの変換は、細胞内で、カルシウムの存在を必要とする酸性区画内で生じることが示された(Veyら、1994)。
しかし、活性なままである、C末端短縮型であり、従って、可溶性形態のフリンの存在は、ネイティブな全長フリンを組換え的に過剰発現する細胞の馴化培地中でほぼ排他的に検出された(Wiseら、1990;RehemtullaおよびKaufman、1992;Vidricaireら、1993;Veyら、1994;Preiningerら、1999)。
フリンポリペプチドを記載する他の先行技術としては、WO91/06314が挙げられ、これは、アミノ酸108〜464からなり、従って、ホモ−Bドメイン、システインリッチ領域、膜貫通ドメインおよび細胞質テイルの一部を欠失する、フリンのフラグメントを記載する。WO92/09698は、全長フリンおよび膜貫通ドメインを欠失するフリンを開示する。さらに、Preiningerら(Cytotechnology 30、1999、pp.1−15)は、システインリッチ領域、膜貫通ドメインおよびサイトゾルドメインを欠失する、フリン変異体を記載する。このような変異体を発現する細胞は、増加した細胞内濃度のフリン誘導体(しかし、分泌レベルは変化する)を含んだ。これらの著者らは、これらの分子の細胞外蓄積の欠失が、これらの分子がほぼおそらく分解されることを示唆すると述べている。さらに、著者らは、細胞内に位置する全長組換えフリンが、ほとんど不活性であるようであること、および、その宿主細胞に対するより多くの量の全長フリンの潜在的毒性が存在することを述べている。
(発明の要旨)
本発明者らは、細胞培養培地中の可溶性フリンが、フリンによって天然でプロセシングされ非特異的に切断されないタンパク質を生じ得ることを見出した。例えば、ネイティブ第VIII因子は、フリンによって天然でプロセシングされないが、第VIII因子は、例えば、細胞培養培地中で長時間フリンに曝露された場合に、可溶性フリンによる誤ったプロセシングに対する標的となり得る。このことは、このような細胞培養培地中の構造的にインタクトな第VIII因子タンパク質の収率の減少を導く。このことは、第VIII因子を、フリンの天然の基質(例えば、フォン・ビルブラント因子)と共に同時発現させた場合か、またはフリンによって天然でプロセシングされる組換えタンパク質を、長時間フリンに対して曝露して、その結果、さらに、誤った部位が切断される場合に当てはまり得る。
本発明者らは、細胞培養培地中の可溶性フリンが、フリンによって天然でプロセシングされ非特異的に切断されないタンパク質を生じ得ることを見出した。例えば、ネイティブ第VIII因子は、フリンによって天然でプロセシングされないが、第VIII因子は、例えば、細胞培養培地中で長時間フリンに曝露された場合に、可溶性フリンによる誤ったプロセシングに対する標的となり得る。このことは、このような細胞培養培地中の構造的にインタクトな第VIII因子タンパク質の収率の減少を導く。このことは、第VIII因子を、フリンの天然の基質(例えば、フォン・ビルブラント因子)と共に同時発現させた場合か、またはフリンによって天然でプロセシングされる組換えタンパク質を、長時間フリンに対して曝露して、その結果、さらに、誤った部位が切断される場合に当てはまり得る。
本発明は、改変されたフリンポリペプチドの使用によって、細胞培養物中のタンパク質の非特異的切断を減少または阻害する。この改変されたフリンポリペプチドは、タンパク質分解活性を有するが、宿主細胞により培養培地中に分泌されないか、または野生型フリンの分泌と比較して減少した量で分泌される。このようなフリンポリペプチドは、大量に細胞内で発現された場合でさえ、宿主細胞に対して毒性ではないことが、見出されている。
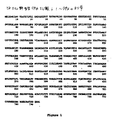
従って、本発明は、野生型フリンと比較して、ホモBドメインと膜貫通ドメインとの間(すなわち、図1および2に示されるアミノ酸配列に従うと、アミノ酸Ala557とLeu713との間)で改変されたアミノ酸配列を有するフリンポリペプチドを提供する。このような改変されたアミノ酸配列を有するフリンポリペプチドは、天然の(すなわち、野生型の)フリンと類似のタンパク質分解活性を有するが、このようなフリンポリペプチドを発現している宿主細胞によって、天然のフリンと比較して実質的に減少した量で培養培地中に分泌されるということは、驚くべき知見であった。
本発明によるフリンポリペプチドが、細胞への実質的な毒性なしに、この細胞内で大量に発現され得ることは、本発明の別の局面である。なおさらなる局面において、改変されたフリンタンパク質の生理学的な切断の性質はなお存在するが、培地中に存在するフリンが少ないか、または培地中にフリンが存在しないために、細胞培養培地中の分泌されたタンパク質または細胞外に局在するタンパク質の偶発的な切断が、非常に減少される。
さらに、本発明のフリンポリペプチドのさらなる利点は、フリン依存性タンパク質のタンパク質分解プロセシングは、細胞内で起こり得るが、フリンによるタンパク質の非特異的プロセシングは、これが完全に排除されない場合でも少なくとも減少され得るということである。従って、細胞培養の馴化培地中の可溶性フリンにタンパク質が暴露される場合に生じ得る、タンパク質の非特異的切断が、本発明によるフリンポリペプチドによって回避される。
別の局面において、本発明は、本発明によるフリンポリペプチドをコードする組換えポリヌクレオチドを提供する。なお別の局面において、本発明は、本発明によるフリンポリペプチドを生成するための方法、本発明によるフリンポリペプチドをコードするポリヌクレオチド配列を含む組換えベクター、このようなベクターを含む宿主細胞、および本発明のフリンポリペプチドを含む調製物を提供する。
本発明は、例えば、以下の項目を提供する:
(項目1) アミノ酸を含むフリンポリペプチドであって、該アミノ酸は、野生型フリンのアミノ酸配列と比較して、改変を含む配列を有し、ここで、該改変が、野生型フリンのアミノ酸Ala557とLeu713との間に存在している、フリンポリペプチド。
(項目2) 前記改変が、野生型フリンのアミノ酸Ala557とLeu713との間にループ構造またはα−ヘリックス構造の形成を生じる、項目1に記載のフリンポリペプチド。
(項目3) 前記改変がアミノ酸577と713との間である、項目1に記載のフリンポリペプチド。
(項目4) 前記改変が5〜30個のアミノ酸の置換である、項目1に記載のフリンポリペプチド。
(項目5) 前記改変が、変異フリンポリペプチドにヘリックス構造またはループ構造の形成を生じる10個以上のアミノ酸の置換である、項目1に記載のフリンポリペプチド。(項目6) 前記改変が、アラニン(A)、ロイシン(L)、フェニルアラニン(F)、トリプトファン(W)、メチオニン(M)、ヒスチジン(H)、グルタミン(Q)、およびバリン(V)からなる群より選択されるアミノ酸の付加または置換を含む、項目1に記載のフリンポリペプチド。
(項目7) 前記改変が、セリン(S)、イソロイシン(I)、トレオニン(T)、グルタミン酸(E)、アスパラギン酸(D)、リジン(K)、アルギニン(R)、グリシン(
G)、チロシン(Y)、システイン(C)、アスパラギン(N)、グルタミン(Q)、プロリン(P)、およびヒドロキシプロリンからなる群より選択されるアミノ酸の付加または置換を含む、項目1に記載のフリンポリペプチド。
(項目8) アミノ酸578〜711が欠失している、項目1に記載のフリンポリペプチド。
(項目9) アミノ酸577と713との間のアミノ酸が、配列AEMWHQAMEVを含むアミノ酸で置換されている、項目1に記載のフリンポリペプチド。
(項目10) アミノ酸577と713との間のアミノ酸が、配列GSPNSQPYDGを含むアミノ酸で置換されている、項目1に記載のフリンポリペプチド。
(項目11) 前記改変がArg683においてである、項目1に記載のフリンポリペプチド。
(項目12) 項目1に記載のフリンポリペプチドをコードする、組換えDNA分子。
(項目13) 前記フリンポリペプチドの発現を可能にする異種性発現コントロール配列に作動可能に連結されている項目12に記載のDNA分子を含む、組換え発現ベクター。(項目14) 項目13に記載の組換えDNA発現ベクターを含む、宿主細胞。
(項目15) 少なくとも1つの組換え発現される前駆体ポリペプチドをコードするポリヌクレオチドをさらに含む、項目14に記載の宿主細胞であって、ここで該ポリペプチドが、コードされるフリンポリペプチドに対する基質である、宿主細胞。
(項目16) 項目1に記載のフリンポリペプチドを産生するための方法であって、該方法は、以下:
(a)発現ベクターを含む宿主細胞を栄養培地中で増殖させる工程であり、該発現ベクターは、転写の方向に順番に、以下:
該宿主細胞において機能的である、転写調節領域および翻訳開始領域、
項目1に記載の変異フリンポリペプチドをコードするDNA配列、ならびに、
該宿主細胞において機能的な翻訳終止領域および転写終止領域、
を含み、
ここで、該DNA配列の発現は、該開始領域および終止領域によって調節される、工程;
(b)タンパク分解活性を有するフリンポリペプチドの分泌速度を測定する工程;ならびに、
(c)減少した分泌を示すフリンポリペプチドを単離する工程、
を包含する、方法。
(項目17) 項目1に記載のフリンポリペプチドを含有する、薬学的調製物。
別の局面において、本発明は、本発明によるフリンポリペプチドをコードする組換えポリヌクレオチドを提供する。なお別の局面において、本発明は、本発明によるフリンポリペプチドを生成するための方法、本発明によるフリンポリペプチドをコードするポリヌクレオチド配列を含む組換えベクター、このようなベクターを含む宿主細胞、および本発明のフリンポリペプチドを含む調製物を提供する。
本発明は、例えば、以下の項目を提供する:
(項目1) アミノ酸を含むフリンポリペプチドであって、該アミノ酸は、野生型フリンのアミノ酸配列と比較して、改変を含む配列を有し、ここで、該改変が、野生型フリンのアミノ酸Ala557とLeu713との間に存在している、フリンポリペプチド。
(項目2) 前記改変が、野生型フリンのアミノ酸Ala557とLeu713との間にループ構造またはα−ヘリックス構造の形成を生じる、項目1に記載のフリンポリペプチド。
(項目3) 前記改変がアミノ酸577と713との間である、項目1に記載のフリンポリペプチド。
(項目4) 前記改変が5〜30個のアミノ酸の置換である、項目1に記載のフリンポリペプチド。
(項目5) 前記改変が、変異フリンポリペプチドにヘリックス構造またはループ構造の形成を生じる10個以上のアミノ酸の置換である、項目1に記載のフリンポリペプチド。(項目6) 前記改変が、アラニン(A)、ロイシン(L)、フェニルアラニン(F)、トリプトファン(W)、メチオニン(M)、ヒスチジン(H)、グルタミン(Q)、およびバリン(V)からなる群より選択されるアミノ酸の付加または置換を含む、項目1に記載のフリンポリペプチド。
(項目7) 前記改変が、セリン(S)、イソロイシン(I)、トレオニン(T)、グルタミン酸(E)、アスパラギン酸(D)、リジン(K)、アルギニン(R)、グリシン(
G)、チロシン(Y)、システイン(C)、アスパラギン(N)、グルタミン(Q)、プロリン(P)、およびヒドロキシプロリンからなる群より選択されるアミノ酸の付加または置換を含む、項目1に記載のフリンポリペプチド。
(項目8) アミノ酸578〜711が欠失している、項目1に記載のフリンポリペプチド。
(項目9) アミノ酸577と713との間のアミノ酸が、配列AEMWHQAMEVを含むアミノ酸で置換されている、項目1に記載のフリンポリペプチド。
(項目10) アミノ酸577と713との間のアミノ酸が、配列GSPNSQPYDGを含むアミノ酸で置換されている、項目1に記載のフリンポリペプチド。
(項目11) 前記改変がArg683においてである、項目1に記載のフリンポリペプチド。
(項目12) 項目1に記載のフリンポリペプチドをコードする、組換えDNA分子。
(項目13) 前記フリンポリペプチドの発現を可能にする異種性発現コントロール配列に作動可能に連結されている項目12に記載のDNA分子を含む、組換え発現ベクター。(項目14) 項目13に記載の組換えDNA発現ベクターを含む、宿主細胞。
(項目15) 少なくとも1つの組換え発現される前駆体ポリペプチドをコードするポリヌクレオチドをさらに含む、項目14に記載の宿主細胞であって、ここで該ポリペプチドが、コードされるフリンポリペプチドに対する基質である、宿主細胞。
(項目16) 項目1に記載のフリンポリペプチドを産生するための方法であって、該方法は、以下:
(a)発現ベクターを含む宿主細胞を栄養培地中で増殖させる工程であり、該発現ベクターは、転写の方向に順番に、以下:
該宿主細胞において機能的である、転写調節領域および翻訳開始領域、
項目1に記載の変異フリンポリペプチドをコードするDNA配列、ならびに、
該宿主細胞において機能的な翻訳終止領域および転写終止領域、
を含み、
ここで、該DNA配列の発現は、該開始領域および終止領域によって調節される、工程;
(b)タンパク分解活性を有するフリンポリペプチドの分泌速度を測定する工程;ならびに、
(c)減少した分泌を示すフリンポリペプチドを単離する工程、
を包含する、方法。
(項目17) 項目1に記載のフリンポリペプチドを含有する、薬学的調製物。
(発明の詳細な説明)
(フリンポリペプチド)
本発明は、ヒトフリン(このアミノ酸配列は、図1に示されている)のような野生型哺乳動物フリンのアミノ酸配列と比較して、アミノ酸Ala557とLeu713との間で改変されたアミノ酸配列を有するフリンポリペプチドを含む。本開示の目的のために、フリンポリペプチドは、タンパク質分解活性を有する野生型哺乳動物フリンタンパク質のアミノ酸配列の少なくとも一部を含むポリペプチドをいう。好ましい実施形態において、本発明によるフリンポリペプチドの改変は、アミノ酸Ala557とLeu713との間に位置する。代替的な実施形態において、この改変はArg683においてである。なお別の実施形態において、アミノ酸Gly577とHis712との間が欠失される。
(フリンポリペプチド)
本発明は、ヒトフリン(このアミノ酸配列は、図1に示されている)のような野生型哺乳動物フリンのアミノ酸配列と比較して、アミノ酸Ala557とLeu713との間で改変されたアミノ酸配列を有するフリンポリペプチドを含む。本開示の目的のために、フリンポリペプチドは、タンパク質分解活性を有する野生型哺乳動物フリンタンパク質のアミノ酸配列の少なくとも一部を含むポリペプチドをいう。好ましい実施形態において、本発明によるフリンポリペプチドの改変は、アミノ酸Ala557とLeu713との間に位置する。代替的な実施形態において、この改変はArg683においてである。なお別の実施形態において、アミノ酸Gly577とHis712との間が欠失される。
本開示において、用語「改変された(改変した)」および「改変」は、フリンポリペプチドのアミノ酸配列に関して、1以上のアミノ酸の付加、欠失または置換を意味する。このような改変は、例えば、指向された変異誘発もしくはPCR、または生じるポリペプチドのアミノ酸配列における変化を指向する目的でDNA配列を特異的に変化するために適切である、当該分野において公知の遺伝子工学の他の方法によって実施され得る(Current Protocols in Molecular Biology,vol.1,ch.8(Ausubel et al.eds.,J.Wiley and Sons,1989&Supp.1990−93);Protein Engineering(Oxender&Fox eds.,A.Liss,Inc.,1987)。本発明の改変は、ホモBドメインと膜貫通ドメインとの間の領域内(すなわち、フリン分子のアミノ酸Ala557とLeu713との間の領域)である。
好ましくは、本発明のフリンポリペプチドは、ループまたはαヘリックス構造を作製するアミノ酸置換および/または付加を有する。ポリペプチドにおいてアミノ酸がいくつかの異なる二次構造(すなわち、ヘリックス構造またはループ構造)を形成し得ることは、先行技術から周知である(Lehninger A.,”Biochemie”,VCH,1985,pp.102−107;Karlson P.et al.,”Kurzes Lehrbuch der Biochemie,Georg Thieme Verlag,1994,pp.29−32)。これらの構造は、例えば、αヘリックスまたはループを形成する特定のアミノ酸を選択し、それにより生じるポリペプチド内のαヘリックスまたはループのような構造を発生することによって生成され得る(Rost B.and Sander C.,Proc.Natl.Acad.Sci.,1993,pp.7558−7562,Rost B.and Sander C.,1994,Proteins:Structure,Function and Genetics,19,pp.55−72)。さらに、Kyte J.and Doolittle R.(1983,J.Mol.Biol.,157,pp.105−132)に従って、このようなアミノ酸は、これらのヒドロパシー値に基づいて選択され得る。これは、ネガティブヒドロパシー値を示すアミノ酸はこれらの側鎖が水性溶媒に接近し得る親水性であるが、ポジティブヒドロパシー値を示すアミノ酸はタンパク質内部に含まれる傾向のある疎水性アミノ酸であるという知識の観点からである。さらに、非常に高いポジティブヒドロパシー値またはネガティブヒドロパシー値を示すアミノ酸は、種々のプロテアーゼについて好ましい標的であることが公知である。
従って、好ましい実施形態において、いくつかのアミノ酸(好ましくは、5と30との間、より好ましくは、10と20との間)の挿入が存在する。これは、本発明の改変されたフリンポリペプチドにおいてループ構造またはヘリックス構造を生成する。
代替の実施形態において、アミノ酸の挿入は、ヘリックス構造を生じる。このような実施形態において、アミノ酸は、好ましくは、アラニン(A)、ロイシン(L)、フェニルアラニン(F)、トリプトファン(W)、メチオニン(M)、ヒスチジン(H)、グルタミン(Q)、バリン(V)およびグルタミン酸(E)からなる群より選択される。例えば、アミノ酸558〜738、好ましくはアミノ酸578〜711は、アミノ酸配列EAMHA(配列番号1)、AWFQW(配列番号2)またはAQMWHEAMEFWAMQFEAMHA(配列番号3)によって置換される。好ましい実施形態において、フリンポリペプチドのアミノ酸578〜711は、アミノ酸配列AEMWHQAMEV(配列番号4)によって置換される。
なお別の実施形態において、アミノ酸挿入は、ループ構造を形成し、ここで、このアミノ酸は、好ましくはセリン(S)、イソロイシン(I)、スレオニン(T)、グルタミン酸(E)、アスパラギン酸(D)、リジン(K)、アルギニン(R)、グリシン(G)、チロシン(Y)、システイン(C)、アスパラギン(N)、プロリン(P)、グルタミン(Q)およびヒドロキシプロリンからなる群より選択される。例えば、アミノ酸558〜738、好ましくは、アミノ酸578〜711は、アミノ酸配列SYNPG、SYQPDまたはGSPYQTNGPSによって置換される。好ましい実施形態において、フリンポリペプチドのアミノ酸578〜711は、アミノ酸配列GSPNSQPYDG(配列番号5)によって置換される。
ループ構造またはヘリックス構造を形成するためのアミノ酸の選択は、当業者に周知である(Lehninger A.,”Biochemie”,VCH,1985,pp.102−107)。
代替の実施形態において、フリン配列のアミノ酸位683のアルギニンは、任意のアミノ酸、好ましくはリジン、グルタミン酸またはイソロイシンによって置換され得る。
(核酸およびベクター)
本発明の別の実施形態は、本発明のフリンポリペプチドをコードするポリヌクレオチドを提供する。このようなポリヌクレオチドに使用される核酸は、DNAおよび/またはRNAであり得る。
本発明の別の実施形態は、本発明のフリンポリペプチドをコードするポリヌクレオチドを提供する。このようなポリヌクレオチドに使用される核酸は、DNAおよび/またはRNAであり得る。
全長フリンポリヌクレオチド、およびタンパク質分解活性を有するフリンポリペプチドをコードするこの任意の誘導体は、本発明のフリンポリペプチドの構築のための出発物質として使用され得る。ネイティブなヒトフリンをコードするcDNA配列は、van den Ouweland,A.M.W.et al.(Nucleic Acid Res.,1990,18(3),p.664)およびFuller R.S.et al.(Science,1989,246:482)によって公表された。このようなフリンポリヌクレオチドは、任意の哺乳動物種、好ましくは、ヒト供給源、ブタ供給源またはウシ供給源由来であり得る。
ポリヌクレオチドは、上記DNAまたはRNAの異種性発現のために適切なエレメントを提供するベクターによって発現される。発現ベクターは、例えば、宿主細胞において機能的な転写調節領域および翻訳開始領域、本発明のフリンポリヌクレオチドをコードする
DNA配列、ならびに上記宿主細胞において機能的な翻訳終止領域および転写終止領域を含む。ここで、上記核酸配列の発現は、上記開始領域および終止領域によって調節される。
DNA配列、ならびに上記宿主細胞において機能的な翻訳終止領域および転写終止領域を含む。ここで、上記核酸配列の発現は、上記開始領域および終止領域によって調節される。
発現ベクターはまた、上記DNAまたはRNAの複製についてのエレメントを含み得る。発現ベクターは、DNAベクターまたはRNAベクターであり得る。DNAクローニングベクターおよび発現ベクターの例は、以下である:pBSSKII(Short,J.M.,Fernandez,J.M.,Sorge,J.A. and Huse,W.D.Lambda ZAP,1988,Nucleic Acids Research 16(15),7583−7600;Alting.Mees,M.A.,and Short,J.M.,1989,Nucleic Acids Research 17(22),9494)、pBPV、pSVL、pCMV、pRc/RSV、筋原性ベクター系(WO93/09236)またはウイルス系(例えば、ワクシニアウイルス、アデノウイルス、アデノ随伴ウイルス、ヘルペスウイルス、レトロウイルスまたはバキュロウイルス)由来のベクター。RNA発現ベクターの例は、レトロウイルスまたはフラビウイルスのようなRNAウイルス由来のベクターである。
いくつかの場合において、フリンポリペプチドに対してタンパク質前駆体を発現する遺伝子の複数のコピーまたはその逆のコピーを有することが望ましい。これは、従来技術に十分に記載される様式で達成され得る。あるいは、異なる転写開始速度または異なるプロモーターを有する2つの転写調節領域を使用して、本発明に従うフリンポリペプチド、または前駆体ポリペプチドおよび/もしくはフリンによってタンパク質分解処理されないさらなるポリペプチドのいずれかの増大した発現を提供する。
本発明に従う改変されたフリンポリペプチドをコードするポリヌクレオチドを含む発現ベクターを使用して、宿主細胞を形質転換し、次いでこのポリペプチドを産生し得る。この形質転換した宿主細胞を、細胞培養系中で増殖して、インビトロでこのポリペプチドを産生し得る。
遺伝子治療におけるいくつかの特定の適用について、すなわち、核酸自体が、哺乳動物の器官に注射される場合、この核酸、DNAおよびRNAは、化学的に改変され得る。この化学的改変は、例えば、骨格または末端を安定化することによって、ヌクレアーゼ消化から核酸を保護する改変であり得る。
本発明のフリンポリペプチドをコードする核酸を含む発現ベクターは、宿主細胞にインビトロで予め形質転換することなく、哺乳動物にさらに投与され得る。このタイプの遺伝子治療の実際の背景は、いくつかの特許出願(例えば、WO90/11092)に開示される。この核酸を含む発現ベクターは、適切なキャリア(例えば、生理学的緩衝溶液)と混合され、そして器官(好ましくは、哺乳動物の骨格筋、皮膚または肝臓)に注射される。
(宿主細胞)
本発明に従う改変されたフリンポリペプチドは、好ましくは、組換え発現によって産生される。これは、当該分野で公知の発現系(例えば、永久細胞株またはウイルス発現系)を用いる遺伝子操作によって調製され得る。永久細胞株は、例えば、vero、MRC5、CHO、BHK、293、HEK 293、Sk−Hep1、肝臓細胞、腎臓細胞、線維芽細胞、ケラチノサイトまたは筋芽細胞、肝細胞または幹細胞(例えば、造血幹細胞)の宿主細胞ゲノムに、異種DNAを安定に組み込むことによって、または例えば、パピローマウイルス由来のエピソームベクターによって、調製される。
本発明に従う改変されたフリンポリペプチドは、好ましくは、組換え発現によって産生される。これは、当該分野で公知の発現系(例えば、永久細胞株またはウイルス発現系)を用いる遺伝子操作によって調製され得る。永久細胞株は、例えば、vero、MRC5、CHO、BHK、293、HEK 293、Sk−Hep1、肝臓細胞、腎臓細胞、線維芽細胞、ケラチノサイトまたは筋芽細胞、肝細胞または幹細胞(例えば、造血幹細胞)の宿主細胞ゲノムに、異種DNAを安定に組み込むことによって、または例えば、パピローマウイルス由来のエピソームベクターによって、調製される。
あるいは、内在性フリン活性を有さない細胞株が使用され得る(Moehring J.M.およびMoehring T.J.,Infect.Immun.,41,1983,998〜1009頁)。例えば、CHO−RPE40またはFD11−CHO細胞が使用され得る。ここで、本発明のトランスフェクトされたフリンのタンパク質分解活性は、内在性フリンのバックグラウンド活性を回避して、容易に測定され得る。
ウイルス発現系(例えば、ワクシニアウイルス系、バキュロウイルス系またはレトロウイルス系)もまた用いられ得る。vero、MRC5、CHO、BHK、293、Sk−Hep1、腺、肝臓または腎臓の細胞が、細胞株として、一般的に使用される。真核生物発現系(例えば、酵母、内在性腺(例えば、トランスジェニック動物の腺)、およびトランスジェニック動物)もまた、本発明に従うフリンポリペプチドの発現のために使用され得る。組換えタンパク質の発現について、CHO−DHFR細胞が、特に有用であることが判明している(Urlaubら、Proc.Natl.Acad.Sci.,USA,第77巻、4216〜4220頁、1980)。
本発明に従うフリンポリペプチドは、適切なプロモーターの制御下で、それぞれの発現系において発現される。真核生物における発現について、公知のプロモーター(例えば、SV40、CMV、RSV、HSV、EBV、β−アクチン、hGHまたは誘導性プロモーター(例えば、hspまたはメタロチオネインプロモーター))が適切である。
好ましい実施形態において、本発明は、本発明に従うフリンポリペプチドおよび前駆体ポリペプチドを生成するための方法を提供する。好ましくは、このフリンポリペプチドは、フォン・ビルブラント因子タンパク質および/または第VIII因子タンパク質と同時発現される。
さらなる局面において、本発明は、本発明に従うフリンポリペプチドを生成するための方法を提供する。この方法は、栄養培地中で、発現ベクターを含む宿主細胞を増殖させる工程を包含し、この発現ベクターは、宿主細胞において機能的な転写調節領域および翻訳開始領域、本発明のフリンポリペプチドをコードするDNA配列、ならびにこの宿主細胞において機能的な翻訳終止領域および転写終止領域を、転写の方向で含む。このDNA配列の発現は、この開始領域および終止領域によって調節される。この方法は、タンパク質分解活性を有する発現されたフリンポリペプチドの分泌速度を測定する工程、および野生型フリンを発現する宿主細胞と比較して減少した分泌を示すフリンポリペプチドを発現する宿主細胞を単離する工程をさらに包含する。
(薬学的調製物)
本発明に従うフリンポリペプチドは、本発明に従う改変されたフリンポリペプチドを、一成分調製物として有するか、または多成分系として他の成分と組み合わせて有する薬学的調製物として提供され得る。特定の実施形態において、本発明のフリンポリペプチドは、プロタンパク質(例えば、フォン・ビルブラント因子)と合わされ得る。
本発明に従うフリンポリペプチドは、本発明に従う改変されたフリンポリペプチドを、一成分調製物として有するか、または多成分系として他の成分と組み合わせて有する薬学的調製物として提供され得る。特定の実施形態において、本発明のフリンポリペプチドは、プロタンパク質(例えば、フォン・ビルブラント因子)と合わされ得る。
(特異的活性)
本発明の1つの局面によると、本発明のフリンポリペプチドは、野生型フリンタンパク質(例えば、野生型ヒトフリン)のタンパク質分解活性と比較して、少なくとも50%、好ましくは少なくとも100%のフリンタンパク質分解活性を有する。
本発明の1つの局面によると、本発明のフリンポリペプチドは、野生型フリンタンパク質(例えば、野生型ヒトフリン)のタンパク質分解活性と比較して、少なくとも50%、好ましくは少なくとも100%のフリンタンパク質分解活性を有する。
タンパク質分解活性の評価は、任意の適切な試験によって(例えば、フリンが特異的である二塩基性切断部位からなる蛍光発生性基質を使用することによって)行われ得る(Preininger A.ら、1999,Schlokat U.ら、1996,Biotechnol.Appl.Biochem.,第24巻、257〜267頁)。あるいは、タンパク質分解活性はまた、プロタンパク質(例えば、プロrvWF)と共にフリンを十分な時間インキュベートすることによって測定され得る。プロrvWFのプロセシングの程度は、ウエスタンブロッドによって分析され得る。
(分泌速度)
この分泌速度は、所定の時間内で細胞培養培地中に蓄積する、分泌したフリンポリペプチド(流出フリン)の量として規定され得る。本発明に従う改変されたフリンポリペプチドの分泌速度の減少は、野生型配列を有する、組換え発現されたフリン(例えば、野生型ヒトフリン)または膜貫通領域および/もしくは細胞質領域を欠くフリンの分泌速度と比較して、少なくとも25%、好ましくは、少なくとも50%、より好ましくは、少なくとも90%、最も好ましくは、少なくとも100%である。
この分泌速度は、所定の時間内で細胞培養培地中に蓄積する、分泌したフリンポリペプチド(流出フリン)の量として規定され得る。本発明に従う改変されたフリンポリペプチドの分泌速度の減少は、野生型配列を有する、組換え発現されたフリン(例えば、野生型ヒトフリン)または膜貫通領域および/もしくは細胞質領域を欠くフリンの分泌速度と比較して、少なくとも25%、好ましくは、少なくとも50%、より好ましくは、少なくとも90%、最も好ましくは、少なくとも100%である。
例えば、この分泌速度は、抗フリン抗体との免疫反応性によって測定され得る。適切な抗体は、フリンの触媒ドメインに対して指向され得る(Preiningerら、1999)。
(単離方法)
本発明に従うフリンポリペプチドを、溶解によって細胞から単離し、そして従来の方法によって、必要に応じて、プロテアーゼインヒビターの存在下でさらに精製し得る。この精製は、当該分野で公知のクロマトグラフィー方法、好ましくは、フリンポリペプチドに対する抗体を使用する、アフィニティークロマトグラフィーによって、またはHis−Tag基にフリンポリペプチドを連結し、そしてNi2+−NTAアガロース上にタンパク質を選択的に結合することによって、なされ得る(Preiningerら、1999)。
本発明に従うフリンポリペプチドを、溶解によって細胞から単離し、そして従来の方法によって、必要に応じて、プロテアーゼインヒビターの存在下でさらに精製し得る。この精製は、当該分野で公知のクロマトグラフィー方法、好ましくは、フリンポリペプチドに対する抗体を使用する、アフィニティークロマトグラフィーによって、またはHis−Tag基にフリンポリペプチドを連結し、そしてNi2+−NTAアガロース上にタンパク質を選択的に結合することによって、なされ得る(Preiningerら、1999)。
野生型フリンと比較して本発明のフリンポリペプチドのタンパク質分解特性が、実質的に変更されていないという事実に起因して、野生型フリンによって処理されるタンパク質もまた、本発明のフリンポリペプチドによって処理され得る。すなわち、対のアミノ酸残基を有するタンパク質は、基質として役立ち得る。本発明の使用のための前駆体分子の例としては、以下が挙げられ得るが、これらに限定されない:フォン・ビルブラント因子、第XI因子、プロテインC、プロテインS、プロトロンビン、第X因子、第VII因子、トランスホーミング増殖因子(TFF)βおよびそれらのスーパーファミリー(アクチビンおよびインヒビンを含む)、骨形態形成タンパク質(BMP)、インスリン、レラキシン、増殖因子様血小板由来増殖因子(PDGF)、神経発育因子(NGF)、およびウイルスポリペプチド(サイトメガロウイルス(CMV)由来のポリペプチドを含む)、ヒト免疫不全ウイルスならびに単純疱疹ウイルス。
本発明は、続いて記載される実施例において例示される。当業者の範囲内の改変は、本発明の範囲内にあると考えられるべきである。他に規定されない限り、本明細書で使用される全ての技術的な用語および科学的な用語は、本発明が属する分野の当業者によって一般的に理解されるものと同一の意味を有する。本明細書中に記載される材料と類似または等価な任意の方法および材料は、本発明の実施または処理の際に使用され得るが、好ましい方法および材料が、ここに記載される。以下の実施例は、本発明を例示するが、いずれの方法においても本範囲を限定するものではない。
(実施例)
(1.フリンR683Aの構築)
683位にある天然アルギニンの代わりにアミノ酸アラニンを含む、全長フリン変異体R683Aを、伸長したオーバーラッププライマーを用いるPCRベースのアプローチを使用して、構築した(Hoら、1989、Gene、77、51〜59頁)。最初に、2種の標準的なPCR反応を、鋳型としてプラスミドpCMVフリンwt(フリン野生型cDNAを含む)および以下のプライマー対を使用して実施した:4953(5’GGGGGATCCC TCTGGCGAGT GG3’)(配列番号6)および5210(5’CGGGGACTCT GCGCTGCTCT G3’)(配列番号7)または5209(5’CAGAGCAGCG CAGAGTCCCC G3’)(配列番号8)および4954(5’GGGGGATCCC CGCGGCCTAG G3’)(配列番号9)。ここで、5210および5209は、変異を誘導する相補的に伸長される内部プライマーであり、そして4953および4954は、Bam HI制限部位を含む外部プライマーである。第二のPCRラウンドにおいて、最初のPCR反応の2種の精製された増幅産物を、2種の外部プライマー4953および4954の存在下でオーバーラップ伸長のために合わせた。最後の精製されたPCR産物を、Bam HIで消化し、そしてプラスミドpCMV−フリンwt中の野生型Bam HIフラグメントを置換するために使用した。
(1.フリンR683Aの構築)
683位にある天然アルギニンの代わりにアミノ酸アラニンを含む、全長フリン変異体R683Aを、伸長したオーバーラッププライマーを用いるPCRベースのアプローチを使用して、構築した(Hoら、1989、Gene、77、51〜59頁)。最初に、2種の標準的なPCR反応を、鋳型としてプラスミドpCMVフリンwt(フリン野生型cDNAを含む)および以下のプライマー対を使用して実施した:4953(5’GGGGGATCCC TCTGGCGAGT GG3’)(配列番号6)および5210(5’CGGGGACTCT GCGCTGCTCT G3’)(配列番号7)または5209(5’CAGAGCAGCG CAGAGTCCCC G3’)(配列番号8)および4954(5’GGGGGATCCC CGCGGCCTAG G3’)(配列番号9)。ここで、5210および5209は、変異を誘導する相補的に伸長される内部プライマーであり、そして4953および4954は、Bam HI制限部位を含む外部プライマーである。第二のPCRラウンドにおいて、最初のPCR反応の2種の精製された増幅産物を、2種の外部プライマー4953および4954の存在下でオーバーラップ伸長のために合わせた。最後の精製されたPCR産物を、Bam HIで消化し、そしてプラスミドpCMV−フリンwt中の野生型Bam HIフラグメントを置換するために使用した。
(2.フリン欠失変異体のへリックス10、ループ10およびΔ578−711の構築)
フリン発現構築物のへリックス10(10個の螺旋構造の残基によって置換Sなれたアミノ酸残基578−711の欠失を含む)、ループ10(10個のループ構造の残基によって置換されたアミノ酸残基578−711の欠失を含む)およびΔ578−711(アミノ酸残基578−711の欠失を含む)を、逆PCRによって産生した。このために、野生型フリンの内部の1176bp Bam HIフラグメントを、ベクターpBS SKII(+)(Stratagene)のBam HI部位にサブクローングした。得られたプラスミドpBS/fur1176を、個々の構築物の逆PCR反応のための鋳型として使用した。へリックス10およびループ10の場合において、特定のセンスプライマーおよび逆方向プライマーの各々は、それらの5’末端に、5個の螺旋構造アミノ酸またはループ構造アミノ酸をコードする、さらなる15個のオーバーハングヌクレオチドを含んだ。以下のプライマーセットを使用した:へリックス10について:センスプライマー5699(5’CAGGCCATGG AGGTGCACCT GCCTGAGGTG GTGGCCGGCC TCAGC3’)(配列番号10)および逆方向プライマー5700(5’GTGCCACATC TCGGCCCCCT CAGGGGCGGT GCCATAGAGT ACGAG3’)(配列番号11)、ループ10について:センスプライマー5701(5’CAGCCCTACG ACGGCCACCT GCCTGAGGTG GTGGCCGGCC TCAGC3’)(配列番号12)および逆方向プライマー5702(5’GCTGTTGGGG CTGCCCCCCT CAGGGGCGGT GCCATAGAGT ACGAG3’)(配列番号13)、ならびにΔ578−711について:センスプライマー5723(5’CACCTGCCTG AGGTGGTGGC C3’)(配列番号14)および逆方向プライマー5724(5’CCCCTCAGGG GCGGTGCCAT A3’)(配列番号15)。得られたPCRフラグメントを精製し、T4ポリヌクレオチドキナーゼ(New England Biolabs)で処理し、T4 DNAリガーゼ(Roche)で再連結し、そしてE.coli株XL1 Blue MRF’(Stratagene)中に形質転換した。導入された改変を含む、ポジティブクローンを、配列決定により選択し、そして変異したBamHIフラグメントを、pCMV−フリンwt中のwt 1176bp BamHIフラグメントを置換するために使用した。
フリン発現構築物のへリックス10(10個の螺旋構造の残基によって置換Sなれたアミノ酸残基578−711の欠失を含む)、ループ10(10個のループ構造の残基によって置換されたアミノ酸残基578−711の欠失を含む)およびΔ578−711(アミノ酸残基578−711の欠失を含む)を、逆PCRによって産生した。このために、野生型フリンの内部の1176bp Bam HIフラグメントを、ベクターpBS SKII(+)(Stratagene)のBam HI部位にサブクローングした。得られたプラスミドpBS/fur1176を、個々の構築物の逆PCR反応のための鋳型として使用した。へリックス10およびループ10の場合において、特定のセンスプライマーおよび逆方向プライマーの各々は、それらの5’末端に、5個の螺旋構造アミノ酸またはループ構造アミノ酸をコードする、さらなる15個のオーバーハングヌクレオチドを含んだ。以下のプライマーセットを使用した:へリックス10について:センスプライマー5699(5’CAGGCCATGG AGGTGCACCT GCCTGAGGTG GTGGCCGGCC TCAGC3’)(配列番号10)および逆方向プライマー5700(5’GTGCCACATC TCGGCCCCCT CAGGGGCGGT GCCATAGAGT ACGAG3’)(配列番号11)、ループ10について:センスプライマー5701(5’CAGCCCTACG ACGGCCACCT GCCTGAGGTG GTGGCCGGCC TCAGC3’)(配列番号12)および逆方向プライマー5702(5’GCTGTTGGGG CTGCCCCCCT CAGGGGCGGT GCCATAGAGT ACGAG3’)(配列番号13)、ならびにΔ578−711について:センスプライマー5723(5’CACCTGCCTG AGGTGGTGGC C3’)(配列番号14)および逆方向プライマー5724(5’CCCCTCAGGG GCGGTGCCAT A3’)(配列番号15)。得られたPCRフラグメントを精製し、T4ポリヌクレオチドキナーゼ(New England Biolabs)で処理し、T4 DNAリガーゼ(Roche)で再連結し、そしてE.coli株XL1 Blue MRF’(Stratagene)中に形質転換した。導入された改変を含む、ポジティブクローンを、配列決定により選択し、そして変異したBamHIフラグメントを、pCMV−フリンwt中のwt 1176bp BamHIフラグメントを置換するために使用した。
一般に、標的配列の増幅は、市販の10×PCR緩衝液および2.5U VentR(登録商標)DNAポリメラーゼ(New England Biolabs)中の30pMolの各プライマー、200μMの各dNTP、2mMのMgSO4を含む、全容積100μlの10〜20ngの鋳型DNAを使用する、30サイクルのPCRを、55℃でのアニーリングおよび72℃での伸長温度で慣用的に実施した。PCRフラグメントを、QIAEX II Gel Extraction Kit(Qiagen)を使用して、供給者の指示書に従って精製した。
フリン欠失改変体Δ578−711中へのへリックス10の挿入は、アミノ酸配列AEMWHQAMEV(配列番号4)を含む。
フリン欠失改変体Δ578−711中へのループ10の挿入は、アミノ酸配列GSPNSQPYDG(配列番号5)を含む。
(3.トランスフェクション、細胞培養およびタンパク質収集)
フリン構築物は、293HEK細胞(ヒト胚性腎臓線維芽細胞;ATCC CRL1573)およびFD11−CHO−rvWF細胞(FD11−CHOは、フリン欠損細胞である)において一過性発現された。10%ウシ胎仔血清(完全培地)を補充したDMEM/HamのF12(1:1)培地(Life Technologies)において、細胞を増殖させた。トランスフェクションのために、細胞を5cm培養ディッシュ(Costar)上で50〜75%のコンフルエンシーまで増殖させ、そして以前に記載(Fischerら、1994)のように、リン酸カルシウム共沈によってトランスフェクトした。一過性トランスフェクションを、20μgの発現プラスミドを用いて実行した。
フリン構築物は、293HEK細胞(ヒト胚性腎臓線維芽細胞;ATCC CRL1573)およびFD11−CHO−rvWF細胞(FD11−CHOは、フリン欠損細胞である)において一過性発現された。10%ウシ胎仔血清(完全培地)を補充したDMEM/HamのF12(1:1)培地(Life Technologies)において、細胞を増殖させた。トランスフェクションのために、細胞を5cm培養ディッシュ(Costar)上で50〜75%のコンフルエンシーまで増殖させ、そして以前に記載(Fischerら、1994)のように、リン酸カルシウム共沈によってトランスフェクトした。一過性トランスフェクションを、20μgの発現プラスミドを用いて実行した。
無血清完全培地をコンフルエンシー(一般的に、トランスフェクションの48時間後)のトランスフェクトされた細胞に適用し、それらをPBS(Ca2+およびMg2+を含まない、Life Technologies)で2回洗浄した後に、組換えタンパク質を収集した。馴化培地を収集し、そして遠心分離によって浄化した。接着細胞を、トリプシン処理し、PBSで洗浄し、そして細胞の総数を、30μmキャピラリーを使用して、CASYカウンター(Scharfe Systems、Germany)によって決定した。細胞抽出物を、その細胞を5×10⁷細胞/mlの濃度の溶解緩衝液(20mM Tris−HCl、pH7.5、150mM NaCl、1mM EDTAおよび0.5%Triton(登録商標)X−100を含有する)で溶解させることによって調製した。30分間4℃でのインキュベーションの後に、溶解物を、15分間、10,000×g、4℃で遠心分離することによって浄化した。
(4.ウェスタンブロット)
サンプルを還元し、そして変性させ、4%スタッキング/8%または10%分離ゲル上でのSDS−PAGEによって分離し、そして記載されるように(Schlokatら、1996)、ウェスタンブロッティングによって視覚化した。FD11−CHO−rvWFの一過性トランスフェクションから誘導される馴化培地は、充填の前に、speed−vac遠心分離によって20倍に濃縮された。溶解物を、7.5×10細胞等量で、SDS−PAGE上にスロット毎に適用した。フリン分子の検出のために、フリンの触媒ドメインに指向するマウスモノクローナル抗体MON−148(Alexis)および第2抗体としての抗マウスIgGヤギ血清(Sigma)に結合したアルカリホスファターゼを、使用した。組換えvWFを、ウサギ抗vWF抗血清(DAKO)および第2抗体としての抗ウサギIgGヤギ血清(Promega)に結合したアルカリホスファターゼを使用して視覚化した。
サンプルを還元し、そして変性させ、4%スタッキング/8%または10%分離ゲル上でのSDS−PAGEによって分離し、そして記載されるように(Schlokatら、1996)、ウェスタンブロッティングによって視覚化した。FD11−CHO−rvWFの一過性トランスフェクションから誘導される馴化培地は、充填の前に、speed−vac遠心分離によって20倍に濃縮された。溶解物を、7.5×10細胞等量で、SDS−PAGE上にスロット毎に適用した。フリン分子の検出のために、フリンの触媒ドメインに指向するマウスモノクローナル抗体MON−148(Alexis)および第2抗体としての抗マウスIgGヤギ血清(Sigma)に結合したアルカリホスファターゼを、使用した。組換えvWFを、ウサギ抗vWF抗血清(DAKO)および第2抗体としての抗ウサギIgGヤギ血清(Promega)に結合したアルカリホスファターゼを使用して視覚化した。
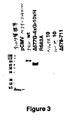
図3は、一過性トランスフェクトされたFD11−CHO−rvWF細胞の馴化培地における流出フリンの量を示す。馴化培地を、20倍に濃縮し、そして4%スタッキング/10%分離SDS−PAGEゲルに適用し、変性させた。ウェスタンブロットを、MON−148およびAP結合抗マウスIgG抗体で視覚化した。
コントロールとして、pCMVベクター、野生型フリンポリペプチドおよびΔ577G−4xG−10xHを使用した。フリン構築物Δ577G−4xG−10xHを、Preiningerら(1999)に従って調製した。
図は、明かに、本発明に従うフリン構築物が、いかなる流出も示さない(すなわち、培地への分子の分泌速度が、野生型配列を有するrフリンまたは膜貫通ドメインおよび細胞質ドメインを欠くフリンと比較して実質的に減少する)ことを示す。
(5.馴化培地におけるインビトロフリン活性の分析)
流出フリン分子の機能的活性を、以前に記載された(Schlokatら、1996)ように、螢光原基質によって決定した。
流出フリン分子の機能的活性を、以前に記載された(Schlokatら、1996)ように、螢光原基質によって決定した。
(6.細胞内rフリン活性の証拠)
フリン変異体R683Aまたは野生型フリンを安定に発現するFD11−CHO−rvWF細胞を、20μgフリン発現プラスミドおよび1μgの選択プラスミドpCMV−hyg(ハイグロマイシンB(Roche)に対する耐性を媒介する)を使用して同時トランスフェクションによって確立した。耐性クローンを、トランスフェクションの2週間後に単離し、そして選択圧下でサブクローニングすることによって安定化した。3つのFD11−CHO−rvWF/R683Aクローン(クローン1、2、および3)(分泌されるrフリンの量で異なり、結果として種々の程度のrvWF前駆体プロセシングを示す)を選択した。
フリン変異体R683Aまたは野生型フリンを安定に発現するFD11−CHO−rvWF細胞を、20μgフリン発現プラスミドおよび1μgの選択プラスミドpCMV−hyg(ハイグロマイシンB(Roche)に対する耐性を媒介する)を使用して同時トランスフェクションによって確立した。耐性クローンを、トランスフェクションの2週間後に単離し、そして選択圧下でサブクローニングすることによって安定化した。3つのFD11−CHO−rvWF/R683Aクローン(クローン1、2、および3)(分泌されるrフリンの量で異なり、結果として種々の程度のrvWF前駆体プロセシングを示す)を選択した。
細胞内フリン活性を、rvWF前駆体プロセシングの程度と24時間にわたるFD11−CHO−rvWF/R683A馴化培地存在とを相関させることによって実証した。コントロールとして、FD11−CHO−rvWF/フリン wtおよびFD11−CHO−rvWF細胞を使用した。細胞を、コンフルエンシーになるまで6ウェルディッシュ(1ウェル/タイムポイント)で増殖させ、そしてPBSで2回洗浄し、その後、無血清培地を、4時間、8時間、16時間および24時間に適用した。馴化培地を遠心分離によって浄化し、そして流出rフリンの検出のために20倍に濃縮した。rvWF前駆体プロセシングの評価をウェスタンブロットによって行った。
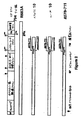
図4は、一過性トランスフェクトされたFD11−CHO−rvWF細胞におけるrvWF前駆体のプロセシングを示す。100ng rvWFをレーンごとに適用した。プローブを還元し、変性し、そして4%スタッキング/5%分離SDS−PAGEゲルに適用した。ウェスタンブロットを、ポリクローナルウサギ抗vWFおよびAP結合抗ウサギIgG抗体を用いて展開した。細胞は一過性トランスフェクトされたのみであったが、R683A、Helix 10、Loop10およびΔ578−711フリン構築物は、タンパク質分解活性を明示した。用語、一過性トランスフェクトされたとは、遺伝的に不均一な混合細胞集団を反映する。トランスフェクション効率に依存して、細胞のうちのいくつかのみがトランスフェクトされる。
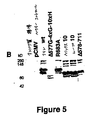
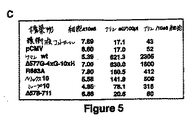
図5(図5A〜5Cを含む)は、一過性トランスフェクトされたHEK293細胞におけるフリン発現を示す:
図5Aは、一過性トランスフェクトされたHEK293細胞の馴化培地における流出フリンを示す。15μlの馴化培地をスロット毎に適用した。プローブを還元し、変性し、そして4%スタッキング/10%分離SDS−PAGEゲルに適用した。ウェスタンブロットを、MON−148およびAP結合抗マウスIgG抗体を用いて展開した。
図5Aは、一過性トランスフェクトされたHEK293細胞の馴化培地における流出フリンを示す。15μlの馴化培地をスロット毎に適用した。プローブを還元し、変性し、そして4%スタッキング/10%分離SDS−PAGEゲルに適用した。ウェスタンブロットを、MON−148およびAP結合抗マウスIgG抗体を用いて展開した。
図5Bは、HEK293溶解物における細胞内rフリンの測定を示す。7.5×10e5細胞等量をスロット毎に適用した。
図5Cは、馴化培地および螢光原基質を使用するインビトロアッセイの結果を示す。
図5Aは、特異的抗体によって検出可能な培地における分泌されたフリンポリペプチドの量が、非常に減少することを示す。これは、図5Cに示されるインビトロ活性測定によって確認された。図5Bのデータは、フリンポリペプチドが細胞内に位置することを示す。
図6は、フリン構築物R683Aの細胞内タンパク質分解活性を示す。馴化培地におけるrvWF前駆体タンパク質プロセシングの程度および流出rフリンの存在を比較する。この図は、流出フリンが培地において検出されないとしても、vWFタンパク質の有意なタンパク質分解プロセシングが生じることを示す。これは、このフリンポリペプチドが、培地に分泌されなくても、タンパク質分解的に活性であることを示す。
上側のレーンは、vWFウェスタンブロットであり、ここで、100ng rvWFは、レーン毎に適用される。ポジティブコントロールとして、CHO−rvWFを使用した。
下側のレーンは、馴化培地のフリンウェスタンブロットである。この物質は、レーン毎に20倍に濃縮される。ポジティブコントロールとして、流出野生型rvWFを使用した。
Claims (1)
- 明細書中に記載の発明。
Applications Claiming Priority (2)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US09/592,480 | 2000-06-09 | ||
| US09/592,480 US6596526B1 (en) | 2000-06-09 | 2000-06-09 | Furin polypeptides with improved characteristics |
Related Parent Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2011142374A Division JP2011182802A (ja) | 2000-06-09 | 2011-06-27 | 改良された特性を有するフリンポリペプチド |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2014155506A true JP2014155506A (ja) | 2014-08-28 |
Family
ID=24370816
Family Applications (3)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2002501931A Expired - Fee Related JP5591432B2 (ja) | 2000-06-09 | 2001-05-25 | 改良された特性を有するフリンポリペプチド |
| JP2011142374A Withdrawn JP2011182802A (ja) | 2000-06-09 | 2011-06-27 | 改良された特性を有するフリンポリペプチド |
| JP2014114538A Withdrawn JP2014155506A (ja) | 2000-06-09 | 2014-06-03 | 改良された特性を有するフリンポリペプチド |
Family Applications Before (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2002501931A Expired - Fee Related JP5591432B2 (ja) | 2000-06-09 | 2001-05-25 | 改良された特性を有するフリンポリペプチド |
| JP2011142374A Withdrawn JP2011182802A (ja) | 2000-06-09 | 2011-06-27 | 改良された特性を有するフリンポリペプチド |
Country Status (9)
| Country | Link |
|---|---|
| US (1) | US6596526B1 (ja) |
| EP (1) | EP1294864B1 (ja) |
| JP (3) | JP5591432B2 (ja) |
| AT (1) | ATE320485T1 (ja) |
| AU (2) | AU2001278431B2 (ja) |
| CA (1) | CA2411694C (ja) |
| DE (1) | DE60117998T2 (ja) |
| ES (1) | ES2260255T3 (ja) |
| WO (1) | WO2001094383A2 (ja) |
Families Citing this family (12)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US6596526B1 (en) * | 2000-06-09 | 2003-07-22 | Baxter Aktiengesellschaft | Furin polypeptides with improved characteristics |
| EP1799244A4 (en) * | 2004-07-23 | 2010-06-09 | Smith Judith | INHIBITORS OF FURINE |
| US20060094104A1 (en) | 2004-10-29 | 2006-05-04 | Leopold Grillberger | Animal protein-free media for cultivation of cells |
| ES2474573T3 (es) | 2006-01-04 | 2014-07-09 | Baxter International Inc | Medio de cultivo celular sin oligop�ptidos |
| SG192471A1 (en) * | 2007-12-31 | 2013-08-30 | Baxter Int | Substantially animal protein-free recombinant furin and methods for producing same |
| US8241623B1 (en) | 2009-02-09 | 2012-08-14 | David Bermudes | Protease sensitivity expression system |
| EP2569005A1 (en) | 2010-05-12 | 2013-03-20 | INSERM - Institut National de la Santé et de la Recherche Médicale | Furin and biologically active derivatives thereof for use in the prevention or treatment of an inflammatory disease |
| US20140051832A1 (en) * | 2011-03-11 | 2014-02-20 | Universidade De São Paulo - Usp | Method for the production of recombinant human factor viii |
| RU2610436C2 (ru) | 2011-06-02 | 2017-02-10 | Баксалта Инкорпорейтед | Составы рекомбинантного фурина |
| AR102048A1 (es) * | 2014-08-12 | 2017-02-01 | Baxalta Inc | Producción del factor x completamente procesado y funcional en un sistema de expresión de mamífero de secreción de furina |
| EP3642225A1 (en) | 2017-06-23 | 2020-04-29 | Baxalta Incorporated | Purification of factor viii subspecies |
| CN117756926B (zh) * | 2023-12-26 | 2024-06-07 | 广东普言生物科技有限公司 | 一种重组ⅩⅦ型胶原蛋白Pro.C17及其制备方法和应用 |
Family Cites Families (7)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| DK0737750T3 (da) | 1989-03-21 | 2003-09-01 | Vical Inc | Ekspression af exogene polynucleotidsekvenser i vertebrater |
| NL9000917A (nl) | 1989-10-25 | 1991-05-16 | Holland Biotechnology | Farmaceutisch preparaat met endoproteolytische activiteit; werkwijze voor endoproteolytische processing van (precursor) eiwitten en voor de (micro) biologische bereiding van eiwitten. |
| EP0785273A1 (en) * | 1990-11-26 | 1997-07-23 | Genetics Institute, Inc. | Paired basic amino acid converting enzyme and DNA sequence encoding it |
| US5298422A (en) | 1991-11-06 | 1994-03-29 | Baylor College Of Medicine | Myogenic vector systems |
| AT404838B (de) * | 1995-11-24 | 1999-03-25 | Immuno Ag | Herstellung von proteinen aus pro-proteinen durch fusionsproteine abgeleitet von furin oder furinanalogen |
| JPH09295945A (ja) | 1996-04-30 | 1997-11-18 | Hoechst Yakuhin Kogyo Kk | 成熟型骨誘導因子の製造方法 |
| US6596526B1 (en) * | 2000-06-09 | 2003-07-22 | Baxter Aktiengesellschaft | Furin polypeptides with improved characteristics |
-
2000
- 2000-06-09 US US09/592,480 patent/US6596526B1/en not_active Expired - Lifetime
-
2001
- 2001-05-25 AU AU2001278431A patent/AU2001278431B2/en not_active Ceased
- 2001-05-25 CA CA2411694A patent/CA2411694C/en not_active Expired - Lifetime
- 2001-05-25 AU AU7843101A patent/AU7843101A/xx active Pending
- 2001-05-25 ES ES01956445T patent/ES2260255T3/es not_active Expired - Lifetime
- 2001-05-25 WO PCT/EP2001/005991 patent/WO2001094383A2/en not_active Ceased
- 2001-05-25 AT AT01956445T patent/ATE320485T1/de active
- 2001-05-25 JP JP2002501931A patent/JP5591432B2/ja not_active Expired - Fee Related
- 2001-05-25 EP EP01956445A patent/EP1294864B1/en not_active Expired - Lifetime
- 2001-05-25 DE DE60117998T patent/DE60117998T2/de not_active Expired - Lifetime
-
2011
- 2011-06-27 JP JP2011142374A patent/JP2011182802A/ja not_active Withdrawn
-
2014
- 2014-06-03 JP JP2014114538A patent/JP2014155506A/ja not_active Withdrawn
Also Published As
| Publication number | Publication date |
|---|---|
| EP1294864B1 (en) | 2006-03-15 |
| JP2011182802A (ja) | 2011-09-22 |
| DE60117998T2 (de) | 2006-11-16 |
| EP1294864A2 (en) | 2003-03-26 |
| ES2260255T3 (es) | 2006-11-01 |
| WO2001094383A3 (en) | 2002-11-21 |
| CA2411694A1 (en) | 2001-12-13 |
| AU2001278431B2 (en) | 2006-08-10 |
| US6596526B1 (en) | 2003-07-22 |
| JP5591432B2 (ja) | 2014-09-17 |
| JP2004508015A (ja) | 2004-03-18 |
| ATE320485T1 (de) | 2006-04-15 |
| WO2001094383A2 (en) | 2001-12-13 |
| DE60117998D1 (de) | 2006-05-11 |
| AU7843101A (en) | 2001-12-17 |
| CA2411694C (en) | 2013-11-19 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| JP2011182802A (ja) | 改良された特性を有するフリンポリペプチド | |
| Wasley et al. | PACE/furin can process the vitamin K-dependent pro-factor IX precursor within the secretory pathway. | |
| US10626431B2 (en) | Method for improved isolation of recombinantly produced proteins | |
| EP2591101B1 (en) | Systems for factor viii processing and methods thereof | |
| JP4236698B2 (ja) | 宿主細胞でのpaceの発現およびその使用法 | |
| Camire et al. | Enhanced γ-carboxylation of recombinant factor X using a chimeric construct containing the prothrombin propeptide | |
| EP1127154B1 (en) | Method for the production of fvii | |
| MAINS et al. | PACE4: a subtilisin-like endoprotease with unique properties | |
| Laslop et al. | Proteolytic processing of chromogranin B and secretogranin II by prohormone convertases | |
| CA2191053C (en) | A fusion protein comprising a furin derivative or a derivative of a furin analogue and a heterlogous sequence | |
| CZ298298B6 (cs) | Analogy faktoru X s modifikovanými štepnými místyproteas, preparáty tyto látky obsahující, jejich použití a zpusob jejich výroby | |
| CZ298296B6 (cs) | Delecní mutanty faktoru X a jejich analogy | |
| Plaimauer et al. | ‘Shed’furin: mapping of the cleavage determinants and identification of its C-terminus | |
| AU2001278431A1 (en) | Mutated furin polypeptides having improved characteristics | |
| MX2007012704A (es) | Celula huesped que comprende vector para la produccion de proteinas que requieren carboxilacion-gamma. | |
| US6958322B1 (en) | Factor X analog with an improved ability to be activated | |
| AU2015301726A1 (en) | Production of fully processed and functional Factor X in a furin-secreting mammalian expression system | |
| Himmelspach et al. | Recombinant human factor X: high yield expression and the role of furin in proteolytic maturation in vivo and in vitro | |
| Preininger et al. | Strategies for recombinant Furin employment in a biotechnological process: complete target protein precursor cleavage | |
| JP2024180602A (ja) | 第xa因子及び誘導体を調製するための組成物及び方法 | |
| Demasi et al. | Enhanced proteolytic processing of recombinant human coagulation factor VIII B-domain variants by recombinant furins | |
| EP1136553A1 (en) | Production of recombinant blood clotting factors in human cell lines | |
| Suzuki et al. | Functional expression and characterization of a Xenopus laevis peptidylglycine α‐amidating monooxygenase, AE‐II, in insect‐cell culture | |
| MXPA99007817A (en) | Factor x deletion mutants and analogues thereof | |
| HK1184824A (en) | Systems for factor viii processing and methods thereof |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20140603 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20150717 |
|
| A761 | Written withdrawal of application |
Free format text: JAPANESE INTERMEDIATE CODE: A761 Effective date: 20151009 |