JP2017012117A - 3−ヒドロキシ酪酸又はその塩の好気的生産方法 - Google Patents
3−ヒドロキシ酪酸又はその塩の好気的生産方法 Download PDFInfo
- Publication number
- JP2017012117A JP2017012117A JP2015134336A JP2015134336A JP2017012117A JP 2017012117 A JP2017012117 A JP 2017012117A JP 2015134336 A JP2015134336 A JP 2015134336A JP 2015134336 A JP2015134336 A JP 2015134336A JP 2017012117 A JP2017012117 A JP 2017012117A
- Authority
- JP
- Japan
- Prior art keywords
- halomonas
- acid
- hydroxybutyric acid
- salt
- culture
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Granted
Links
Images





Landscapes
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
Abstract
Description
(1) コロニー:クリーム色
(2) 運動性:有
(3) グルコース資化性:有
(4) スクロース資化性:有
(5) キシロース資化性:無
(6) マルトース資化性:有
(7) グルコン酸資化性:有
(8) グリセリン資化性:有
(9) エタノール資化性:有
(10) 乳酸資化性:有
(11) クエン酸資化性:有
(12) 酢酸資化性:有
(13) 酪酸資化性:有
(14) 澱粉加水分解物資化性:有
(15) 硝酸ナトリウムのみを窒素源とする培地での生育:可能
(16) 尿素のみを窒素源とする培地での生育:可能
(17) 生育可能な塩化ナトリウム濃度:0.5〜15%(w/v)
(18) 生育可能なpH範囲:6〜10
(1) コロニー:クリーム色
(2) エタノール資化性:有
(3) 酪酸資化性:有
(4) 尿素を窒素源とする培地での生育:可能
(5) 生育可能な塩化ナトリウム濃度:0.5〜15%(w/v)
(6) 生育可能なpH範囲:6〜10
ハロモナス属微生物の3−ヒドロキシ酪酸及びポリヒドロキシアルカノエート生産性:
(1)ハロモナス属微生物基準株
ハロモナス属に含まれる多数の種の基準株について培養試験を行った。各基準株は独立行政法人理化学研究所バイオリソースセンター(茨城県つくば市高野台3−1−1)から分譲されたものを用いた。
(培養試験)
培養試験ではMB培地を用いた。MB培地はマリンブロス培地(Marine Broth 2216、ベクトンディッキンソン・アンド・カンパニー製)に5w/v%グルコースを追加し、10N水酸化ナトリウムでpH9に調整して使用した。ろ過滅菌した後MB培地3mLを試験管に分注し、ハロモナス属微生物を接種した後で、30℃に保温しながら3日間好気培養(200rpmで振とう)した。
培養後、3−ヒドロキシ酪酸(3−HB)は、培養液の上清を高速液体クロマトグラフィーで分析して定量した。菌体重量は、培養液2mLから集菌した菌体を120℃で3時間乾燥して測定した。ポリヒドロキシ酪酸(PHB)は、培養液2mLから集菌した菌体を硫酸加水分解することによって得られるクロトン酸の量から逆算して求めた。結果を表1に示す。
ハロモナス・エスピーOITC1261株は海岸堆積物から分離した。その16SrRNA遺伝子配列(配列表の配列番号1)について、既知の菌種との相同性検索を行ったところ、ハロモナス・サリフォディナエ(Halomonas salifodinae)やハロモナス・パシフィカ(Halomonas pacifica)と相同性が高いことから、ハロモナス属微生物に分類された。ハロモナス・エスピーOITC1261株は、平成27年3月19日付けで、独立行政法人製品評価技術基盤機構特許微生物寄託センター(千葉県木更津市かずさ鎌足2−5−8)に受託番号NITE P−02027として寄託されている。
ハロモナス属微生物の菌学的性質:
ハロモナス・エスピーOITC1261株、ハロモナス・サリフォディナエ(Halomonas salifodinae)及びハロモナス・パシフィカ(Halomonas pacifica)について、以下の方法により、コロニーの特徴や運動性、利用可能な基質、生育可能な塩化ナトリウム濃度の範囲、生育可能なpHの範囲を調べ比較した。結果を表5に示す。
(1)コロニーの特徴は、マリンアガー培地(Marine Agar 2216、ベクトンディッキンソン・アンド・カンパニー製)を10N水酸化ナトリウムでpH9に調整した寒天培地上に菌を接種して30℃で5日間静置培養し、生育したコロニーの色を観察した。
(2)運動性の有無は、マリンブロス培地(Marine Broth 2216、ベクトンディッキンソン・アンド・カンパニー製)に寒天0.2w/v%とグルコース1%を加えて、10N水酸化ナトリウムでpH9に調整した半流動培地に菌を接種して30℃で7日間静置培養して判定した。
(3)利用可能な炭素源の判定は、表2のSOT改変培地にいずれかの基質(グルコース、スクロース、キシロース、マルトース、グルコン酸、グリセリン、エタノール、乳酸、クエン酸、酢酸、酪酸、水飴)を3w/v%加えてpH9に調整した培地各3mLに菌を接種し、30℃で3日間好気培養(200rpmで振とう)した後、培養液の濁りの有無で生育を確認し、生育が確認できたものは利用可能とした。
(4)利用可能な窒素源の判定は、硝酸ナトリウム培地(SOT改変培地に3w/v%グルコースを加えた培地)又は尿素培地(SOT改変培地の硝酸ナトリウムを尿素に代えて、3w/v%グルコースを加えた培地)の各3mLに菌を接種し、30℃で3日間好気培養した後、培養液の濁りの有無で生育を確認し、生育が確認できたものは利用可能とした。
(5)生育可能な塩化ナトリウム(NaCl)濃度範囲については、0〜20w/v%のNaClを含む培地中での菌の生育の有無を判定した。すなわち、10N水酸化カリウムでpH8に調整した基本培地(0.4w/v%酵母抽出物、0.5w/v%硫酸マグネシウム、5w/v%スクロース)にNaClを加えて、7段階のNaCl濃度(0、0.5、1、5、10、15、20w/v%)にした培地4mLに菌を接種し、30℃で3日間好気培養した後、培養液の濁りの有無で生育を判定した。
(6)生育可能なpH範囲については、pH5〜10に調整した培地中での菌の生育の有無を判定した。すなわち、2Lの基本培地(0.4w/v%酵母抽出物、0.5w/v%硫酸マグネシウム、1w/v%塩化ナトリウム、3w/v%スクロース)を6段階のpH(pH5、6、7、8、9、10)に調整したものに菌を接種し、卓上型培養装置(ジャーファーメンター)で培養条件を一定(温度:30℃、攪拌速度:700rpm、通気量:5L/分、10N水酸化ナトリウム溶液と1N塩酸溶液でpHを自動調整)に保ちながら3日間好気培養し、培養液の濁りの有無で生育を判定した。
好気培養条件による3−HB及びPHB生産量に対する影響:
ハロモナス・エスピーOITC1261株を用い、3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの発酵生産における好気培養条件の影響を確認した。
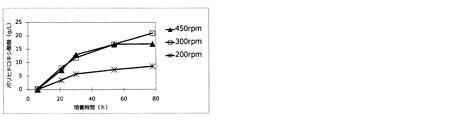
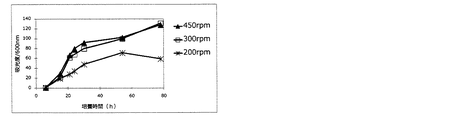
ハロモナス・エスピーOITC1261株は、SOT改変培地(1%グルコース含有)を用いて、35℃で一晩、前培養した。この前培養液0.2mLをSOT改変培地20mLへ加えて33℃で本培養した。本培養では、好気条件について、200rpm(振とう)、300rpm(スターラー撹拌)及び450rpm(スターラー撹拌)の3段階で比較した。培地中の有機炭素源にはグルコースを用いた。初発グルコースを10w/v%とし、24時間後と48時間後にそれぞれ終濃度10w/v%分のグルコースを追加した。培養途中で採取した培養液1mLを用いて、実施例1と同様にして、菌体重量、3−ヒドロキシ酪酸濃度及びポリヒドロキシ酪酸濃度を測定した。また、分光光度計(日本分光株式会社製、型式V−550)を用いて吸光度(600nm)を測定した。結果を図1〜4に示す。
有機炭素源としてグルコースを用いた場合の3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの生産性:
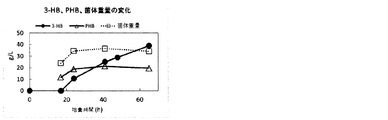
有機炭素源としてグルコースを用いて、ハロモナス・エスピーOITC1261株を好気培養し、3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの生産量、菌体重量を測定した。
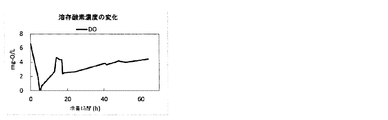
ハロモナス・エスピーOITC1261株は、表6に示すSOT改変培地2に終濃度5w/v%のグルコースを加えた培地100mLで一晩好気培養(30℃、200rpm)したものを前培養液として用いた。本培養では、SOT改変培地2に終濃度10w/v%のグルコースを加えた培地2Lを前培養液とともに卓上型培養装置(ジャーファーメンター)に加えて、培養条件を一定に保ちながら好気培養した(温度:30℃、攪拌速度:700rpm、通気量:5L/分、pH8.5)。本培養では、培養開始から19時間後と48時間後にそれぞれ終濃度10w/v%のグルコースを加えた。培養途中で培養液を5mL分取して、3−ヒドロキシ酪酸、ポリヒドロキシ酪酸及び菌体重量を実施例1と同様にして分析した。結果を図5に示す。また培養液中の溶存酸素濃度を溶存酸素センサー(株式会社丸菱バイオエンジ社製、型式OX−2500)で測定した。結果を図6に示す。
培養開始から10時間後までの対数増殖期では、菌体増殖のために培地中の溶存酸素が多く消費されたが、その後の定常期では3−ヒドロキシ酪酸およびポリヒドロキシ酪酸の生産が始まるとともに、酸素消費量が減少して、溶存酸素濃度は2.3mg−O/Lから4.5mg−O/Lまで徐々に上昇した(図6)。
有機炭素源としてスクロースを用いた場合の3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの生産性:
有機炭素源としてスクロースを用いて、ハロモナス・エスピーOITC1261株を好気培養し、3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの生産量、菌体重量を測定した。
ハロモナス・エスピーOITC1261株は、SOT改変培地2(表6)に終濃度5w/v%のグルコースを加えた培地100mLで一晩好気培養(35℃、200rpm)したものを前培養液として用いた。本培養では、SOT改変培地2に終濃度10w/v%のスクロースを加えた培地2Lを前培養液とともに卓上型培養装置(ジャーファーメンター)に加えて、培養条件を一定に保ちながら好気培養した(温度:35℃、攪拌速度:700rpm、通気量:5L/分、pH8.5)。本培養では、培養開始から17時間後に終濃度10w/v%のスクロースを加え、さらに24時間後に終濃度5w/v%のスクロースを加えた。培養途中で培養液を5mL分取して、3−ヒドロキシ酪酸、ポリヒドロキシ酪酸及び菌体重量を実施例1と同様にして分析した。結果を図7に示す。また培養液中の溶存酸素濃度は、溶存酸素センサー(株式会社丸菱バイオエンジ社製、型式OX−2500)で測定した。結果を図8に示す。
スクロースを炭素源として用いた場合においても、培養開始から10時間後までの対数増殖期では、菌体増殖のために培地中の溶存酸素が多く消費されたが、その後の定常期では3−ヒドロキシ酪酸およびポリヒドロキシ酪酸の生産が始まるとともに、酸素消費量が減少して、溶存酸素濃度は2.4mg−O/Lから4.5mg−O/Lまで徐々に上昇した(図8)。
各種有機炭素源を用いた場合の3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの生産性:
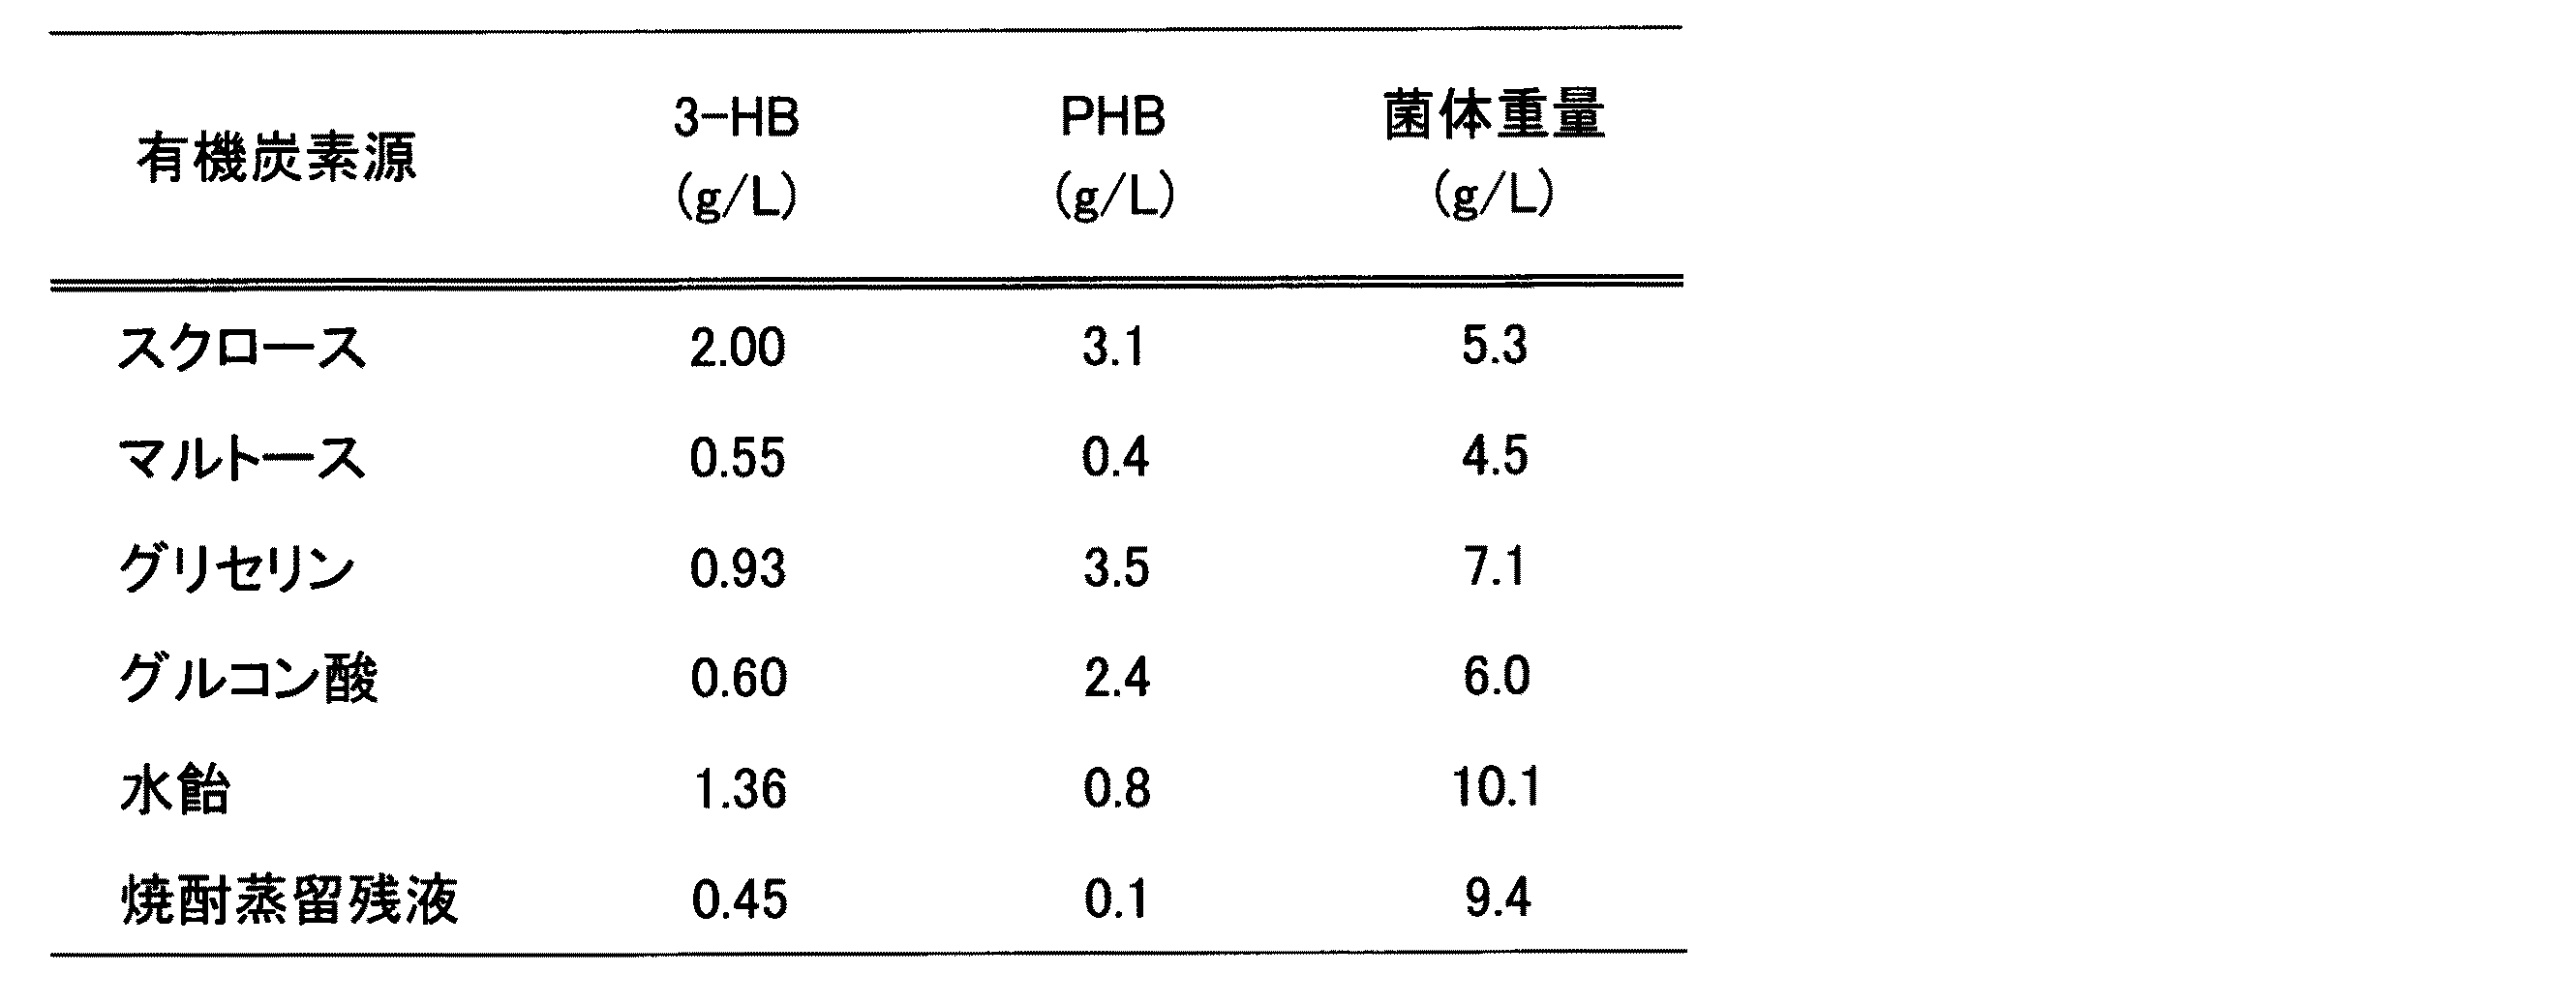
有機炭素源としてスクロース、マルトース、グリセリン、グルコン酸、水飴、焼酎蒸留残液を用いて、ハロモナス・エスピーOITC1261株を好気培養し、3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの生産量、菌体重量を測定した。
SOT改変培地(表2)にいずれかの基質(スクロース、マルトース、グリセリン、グルコン酸、水飴)を2〜5w/v%加えてpH9に調整した培地、又は焼酎蒸留残液(沖縄県工業技術センターで製造した泡盛もろみを単式常圧蒸留してアルコール分を除去したもの)を濾過してpH9に調製した培地を各10mLずつフラスコへ分注し、菌を接種して30℃で2〜3日間好気培養(200rpmで振とう)した。その結果を表7に示す。
繰り返し培養による3−ヒドロキシ酪酸及びポリヒドロキシアルカノエートの生産:
ハロモナス属微生物を好気培養した後、培養液から菌体を回収して繰り返し3−ヒドロキシ酪酸とポリヒドロキシアルカノエートを発酵生産する方法について検討した。
ハロモナス・エスピーOITC1261株を、SOT改変培地2(表6)に終濃度5w/v%のグルコースを加えた培地100mLで3日間好気培養(30℃、200rpm)した。
繰り返し生産では、まず、この培養液のうち10mLを遠心分離して上清を除いた回収菌体をpH10に調整した窒素およびリン制限培地(1.3%炭酸水素ナトリウム、3.4%炭酸ナトリウム、0.1%リン酸水素二カリウム、0.1%硝酸ナトリウム、0.5%塩化ナトリウム、1%糖蜜、10%グルコース)10mLとともに三角フラスコへ移して1回目の好気培養(30℃、200rpm)を行った。1回目の培養液のうち1mLは3−ヒドロキシ酪酸とポリヒドロキシ酪酸の分析に用い、残りの培養液は遠心分離して菌体を回収し、新たな窒素およびリン制限培地10mLとともに再び三角フラスコへ移して2回目の好気培養を行った。2回目以降の成分分析や菌体回収、培養においても1回目と同様の操作を繰り返して行い、生産量の変化を調べた。これらの操作で用いた器具や試薬は全て加熱滅菌せずに使用した。この一連の操作を合計7回繰り返した。結果を図9に示す。
Claims (8)
- ハロモナス・コーリエンシス(Halomonas koreensis)、ハロモナス・サリフォディナエ(Halomonas salifodinae)、ハロモナス・ハロフィラ(Halomonas halophila)、ハロモナス・パシフィカ(Halomonas pacifica)及びハロモナス・エスピー(Halomonas sp.)OITC1261株よりなる群から選ばれるハロモナス属に属する微生物を栄養培地中で好気的に培養して得られる培養液から3−ヒドロキシ酪酸又はその塩を回収することを特徴とする3−ヒドロキシ酪酸又はその塩の製造方法。
- ハロモナス属に属する微生物が、ハロモナス・エスピー(Halomonas sp.)OITC1261株である請求項1記載の3−ヒドロキシ酪酸又はその塩の製造方法。
- 栄養培地が有機炭素源を含有するものである請求項1又は2記載の3−ヒドロキシ酪酸又はその塩の製造方法。
- 有機炭素源がグルコース、スクロース、マルトース、グルコン酸、グリセリン、エタノール、乳酸、クエン酸、酢酸、酪酸、リンゴ酸、コハク酸、α−ケトグルタル酸、ギ酸、ピルビン酸、糖蜜、サトウキビ搾汁液、テンサイ搾汁液、水飴及び焼酎蒸留残液よりなる群から選ばれる1種又は2種以上である請求項1〜3のいずれかの項記載の3−ヒドロキシ酪酸又はその塩の製造方法。
- 栄養培地がさらに無機塩類及び窒素源を含有するものである請求項1〜4のいずれかの項記載の3−ヒドロキシ酪酸又はその塩の製造方法。
- さらに、培養後の培養液からハロモナス属に属する微生物の菌体を回収し、回収した菌体を窒素および/またはリン制限培地中で好気的に培養した後、得られた培養液から3−ヒドロキシ酪酸又はその塩を回収する工程を含むものである請求項1〜5のいずれかの項記載の3−ヒドロキシ酪酸又はその塩の製造方法。
- 配列表の配列番号1に示す16S rRNA遺伝子の塩基配列を相同性98%以上で含み、下記菌学的性質を示すハロモナス属に属する微生物。
(1) コロニー:クリーム色
(2) エタノール資化性:有
(3) 酪酸資化性:有
(4) 尿素を窒素源とする培地での生育:可能
(5) 生育可能な塩化ナトリウム濃度:0.5〜15%(w/v)
(6) 生育可能なpH範囲:6〜10 - ハロモナス・エスピー(Halomonas sp.)OITC1261株(NITE P−02027)である請求項7記載の微生物。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2015134336A JP6521243B2 (ja) | 2015-07-03 | 2015-07-03 | 3−ヒドロキシ酪酸又はその塩の好気的生産方法 |
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2015134336A JP6521243B2 (ja) | 2015-07-03 | 2015-07-03 | 3−ヒドロキシ酪酸又はその塩の好気的生産方法 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2017012117A true JP2017012117A (ja) | 2017-01-19 |
| JP6521243B2 JP6521243B2 (ja) | 2019-05-29 |
Family
ID=57828519
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2015134336A Active JP6521243B2 (ja) | 2015-07-03 | 2015-07-03 | 3−ヒドロキシ酪酸又はその塩の好気的生産方法 |
Country Status (1)
| Country | Link |
|---|---|
| JP (1) | JP6521243B2 (ja) |
Cited By (7)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2018166481A (ja) * | 2017-03-30 | 2018-11-01 | 大阪瓦斯株式会社 | ポリ3−ヒドロキシ酪酸、3−ヒドロキシ酪酸、又は3−ヒドロキシ酪酸塩を製造する製造方法 |
| WO2019035486A1 (ja) * | 2017-08-18 | 2019-02-21 | 拓己 佐藤 | 血糖値スパイク抑制剤、食品及び血糖値スパイク抑制剤の製造方法 |
| JP2020058319A (ja) * | 2018-10-12 | 2020-04-16 | 株式会社ダイセル | 6−ヒドロキシダイゼインの製造方法 |
| CN114958687A (zh) * | 2022-06-24 | 2022-08-30 | 广州金鹏环保工程有限公司 | 一种耐碱的史蒂文斯盐单胞菌及其在处理硫化氢废气中的应用 |
| CN115637247A (zh) * | 2021-07-20 | 2023-01-24 | 中国科学院微生物研究所 | 高效生物氧化脱硫的盐单胞菌工程菌株及其全细胞催化脱硫方法 |
| JP2023136904A (ja) * | 2022-03-17 | 2023-09-29 | 大阪瓦斯株式会社 | ラセミ体3-ヒドロキシ酪酸の光学分割方法 |
| WO2025162229A1 (zh) * | 2024-02-02 | 2025-08-07 | 珠海麦得发生物科技股份有限公司 | 一种生产3-羟基丁酸的菌株及其构建方法和应用 |
Citations (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| WO2013051499A1 (ja) * | 2011-10-07 | 2013-04-11 | 独立行政法人産業技術総合研究所 | 3-ヒドロキシ酪酸又はその塩の産生方法 |
| WO2015072456A1 (ja) * | 2013-11-12 | 2015-05-21 | 独立行政法人産業技術総合研究所 | ハロモナス菌を用いた3-ヒドロキシ酪酸の製造方法 |
-
2015
- 2015-07-03 JP JP2015134336A patent/JP6521243B2/ja active Active
Patent Citations (5)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| WO2013051499A1 (ja) * | 2011-10-07 | 2013-04-11 | 独立行政法人産業技術総合研究所 | 3-ヒドロキシ酪酸又はその塩の産生方法 |
| JP2013081403A (ja) * | 2011-10-07 | 2013-05-09 | National Institute Of Advanced Industrial Science & Technology | 3−ヒドロキシ酪酸又はその塩の産生方法。 |
| US20140363863A1 (en) * | 2011-10-07 | 2014-12-11 | National Institute Of Advanced Industrial Science And Technology | Process for producing 3-hydroxybutyric acid or salt thereof |
| WO2015072456A1 (ja) * | 2013-11-12 | 2015-05-21 | 独立行政法人産業技術総合研究所 | ハロモナス菌を用いた3-ヒドロキシ酪酸の製造方法 |
| US20160265007A1 (en) * | 2013-11-12 | 2016-09-15 | National Institute Of Advanced Industrial Science And Technology | Method for manufacturing 3-hydroxybutyric acid using halomonas sp. |
Non-Patent Citations (2)
| Title |
|---|
| WANG Y ET AL: "Halomonas salifodinae sp. nov., a halophilic bacterium isolated from a salt mine in China", INTERNATIONAL JOURNAL OF SYSTEMATIC AND EVOLUTIONARY MICROBIOLOGY, vol. 58, JPN6018030869, 2008, pages 2855 - 2858, ISSN: 0003855214 * |
| 世嘉良宏斗、他: "沖縄で分離した好アルカリ性細菌による廃糖蜜からの(R)-3-ヒドロキシ酪酸生産", 第65回日本生物工学会大会講演要旨集, JPN6019009781, 25 August 2013 (2013-08-25), pages 72 - 1, ISSN: 0003999975 * |
Cited By (8)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2018166481A (ja) * | 2017-03-30 | 2018-11-01 | 大阪瓦斯株式会社 | ポリ3−ヒドロキシ酪酸、3−ヒドロキシ酪酸、又は3−ヒドロキシ酪酸塩を製造する製造方法 |
| WO2019035486A1 (ja) * | 2017-08-18 | 2019-02-21 | 拓己 佐藤 | 血糖値スパイク抑制剤、食品及び血糖値スパイク抑制剤の製造方法 |
| JP2020058319A (ja) * | 2018-10-12 | 2020-04-16 | 株式会社ダイセル | 6−ヒドロキシダイゼインの製造方法 |
| CN115637247A (zh) * | 2021-07-20 | 2023-01-24 | 中国科学院微生物研究所 | 高效生物氧化脱硫的盐单胞菌工程菌株及其全细胞催化脱硫方法 |
| JP2023136904A (ja) * | 2022-03-17 | 2023-09-29 | 大阪瓦斯株式会社 | ラセミ体3-ヒドロキシ酪酸の光学分割方法 |
| CN114958687A (zh) * | 2022-06-24 | 2022-08-30 | 广州金鹏环保工程有限公司 | 一种耐碱的史蒂文斯盐单胞菌及其在处理硫化氢废气中的应用 |
| CN114958687B (zh) * | 2022-06-24 | 2023-06-02 | 广州金鹏环保工程有限公司 | 一种耐碱的史蒂文斯盐单胞菌及其在处理硫化氢废气中的应用 |
| WO2025162229A1 (zh) * | 2024-02-02 | 2025-08-07 | 珠海麦得发生物科技股份有限公司 | 一种生产3-羟基丁酸的菌株及其构建方法和应用 |
Also Published As
| Publication number | Publication date |
|---|---|
| JP6521243B2 (ja) | 2019-05-29 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| JP6521243B2 (ja) | 3−ヒドロキシ酪酸又はその塩の好気的生産方法 | |
| KR101375029B1 (ko) | 신규 세균 및 이의 이용 방법 | |
| JP5892507B2 (ja) | 3−ヒドロキシ酪酸又はその塩の産生方法。 | |
| US20100086980A1 (en) | Method for producing lactic acid | |
| JP2017113012A (ja) | ハロモナス菌を用いた3−ヒドロキシ酪酸の製造方法 | |
| CN106834177B (zh) | 一株瘤胃菌及其应用 | |
| JP2009148211A (ja) | D−アラビトールの発酵製造方法及びその実施に用いる微生物 | |
| JP7197086B2 (ja) | D-アルロースからアリトールおよびd-タリトールを製造する微生物およびそれを用いるアリトールおよびd-タリトールの製造方法 | |
| JP5717119B2 (ja) | L−乳酸の製造方法 | |
| JP2011083204A (ja) | 好塩菌による高効率なポリヒドロキシアルカノエート(PHAs)等の産生方法 | |
| JP6418628B2 (ja) | ハロモナス菌を用いたピルビン酸の製造方法 | |
| JP6872952B2 (ja) | ポリ3−ヒドロキシ酪酸、3−ヒドロキシ酪酸、又は3−ヒドロキシ酪酸塩を製造する製造方法 | |
| JP6558767B2 (ja) | ハロモナス菌を用いたピルビン酸の製造方法 | |
| JP2009148212A (ja) | マンニトールの発酵製造方法及びその実施に用いる微生物 | |
| JP2005261239A (ja) | 低級アルコールの製造法 | |
| JP2010273582A (ja) | 好塩菌による乳酸及び/又は酢酸の産生方法 | |
| EP1570050B1 (fr) | Souches bacteriennes du genre exiguobacterium, procede de culture et applications | |
| JP3600803B2 (ja) | マンニトール生成菌株カンジダ・マグノリア及びこれを使用したマンニトールの発酵製造方法 | |
| JP2009291132A (ja) | D−乳酸の生産微生物および製造方法 | |
| JP2012191956A (ja) | 乳酸の製造方法 | |
| WO2025062256A1 (en) | A novel high tolerent microorganism for xylitol production | |
| JP5900931B2 (ja) | 微生物を利用したフェニルプロパン系化合物の製造方法 | |
| JP2003245066A (ja) | ロドバクター属の新種微生物 | |
| JP2004254630A (ja) | 生物学的変換方法による1−ペンタノールの製造方法 | |
| JPH0363360B2 (ja) |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20170927 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A821 Effective date: 20170927 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20171211 |
|
| A977 | Report on retrieval |
Free format text: JAPANESE INTERMEDIATE CODE: A971007 Effective date: 20180724 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20180814 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20181012 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20190108 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20190301 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20190326 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20190416 |
|
| R150 | Certificate of patent or registration of utility model |
Ref document number: 6521243 Country of ref document: JP Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |