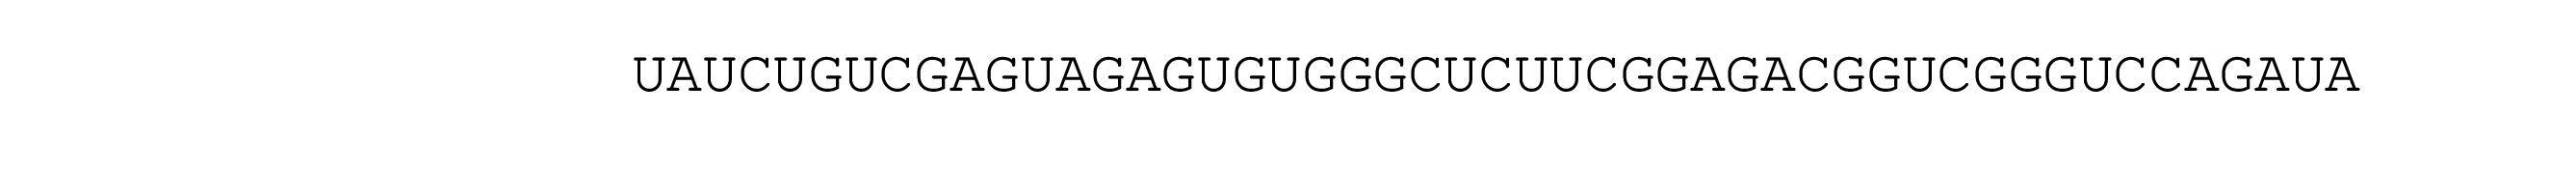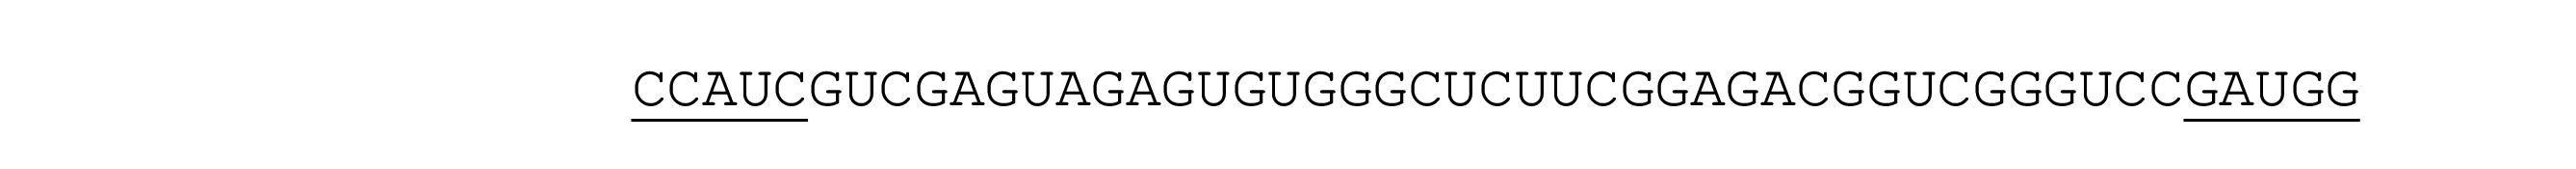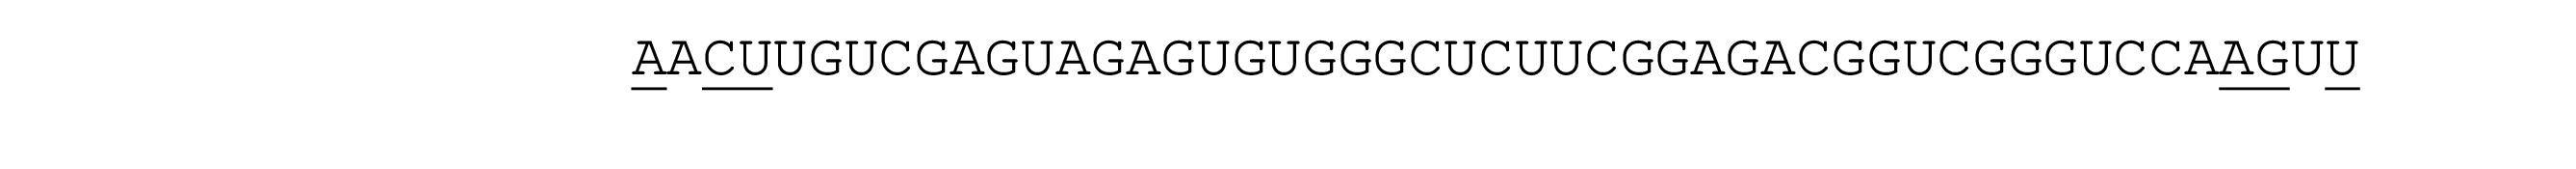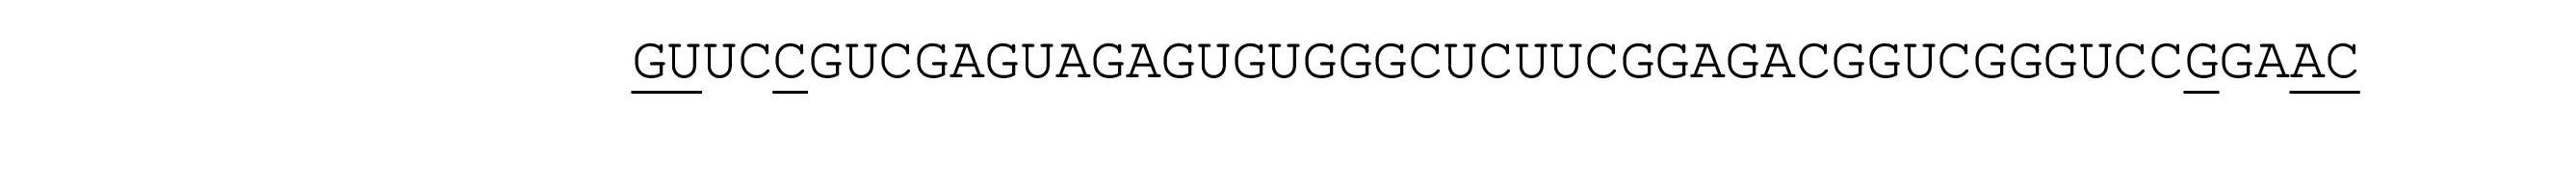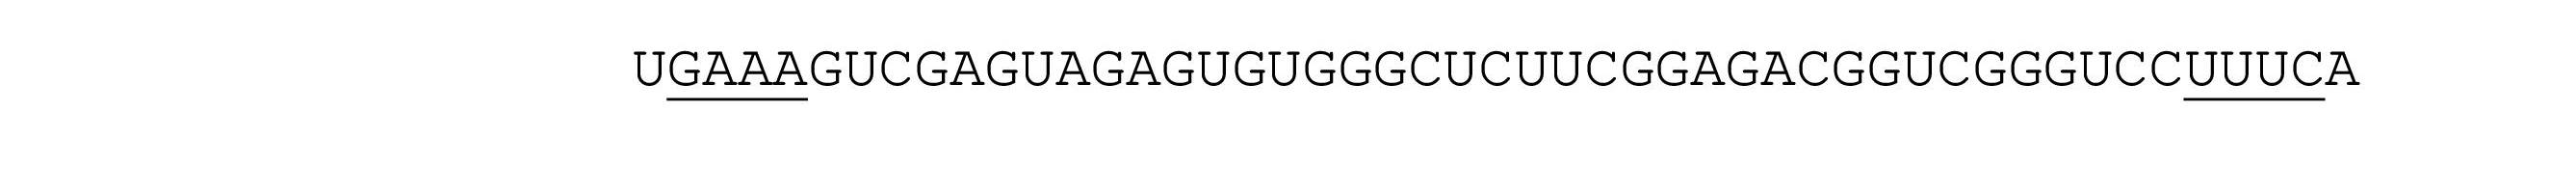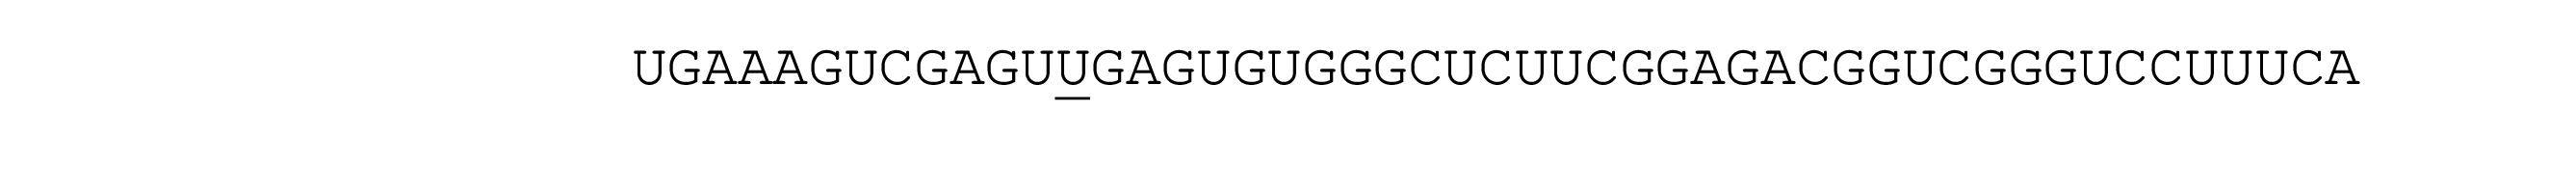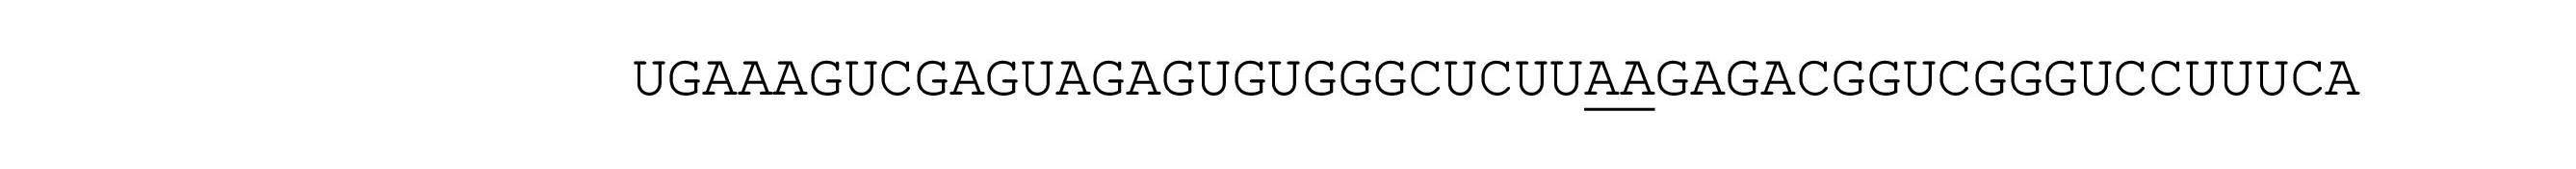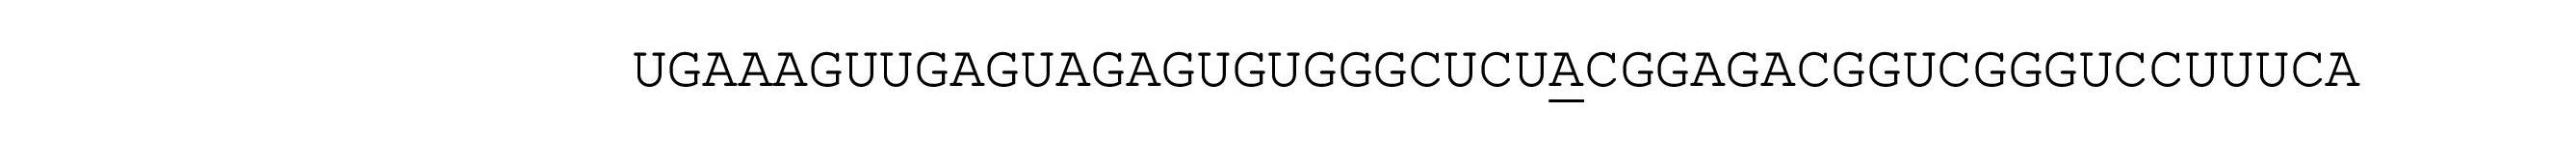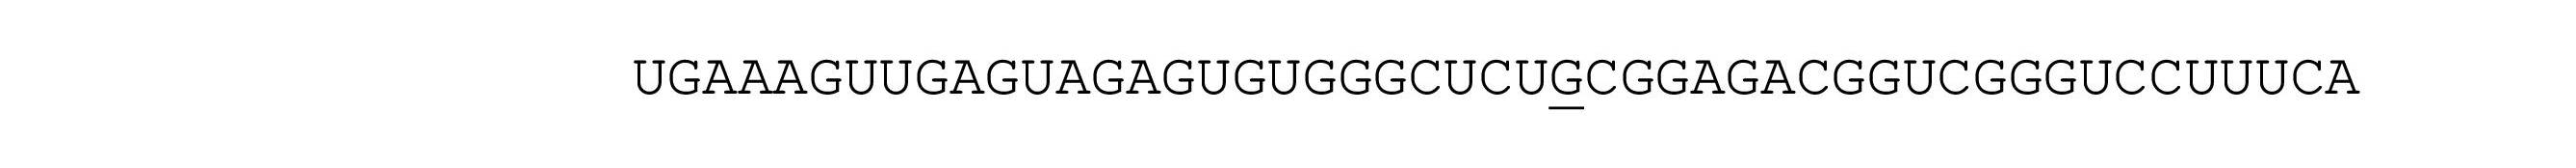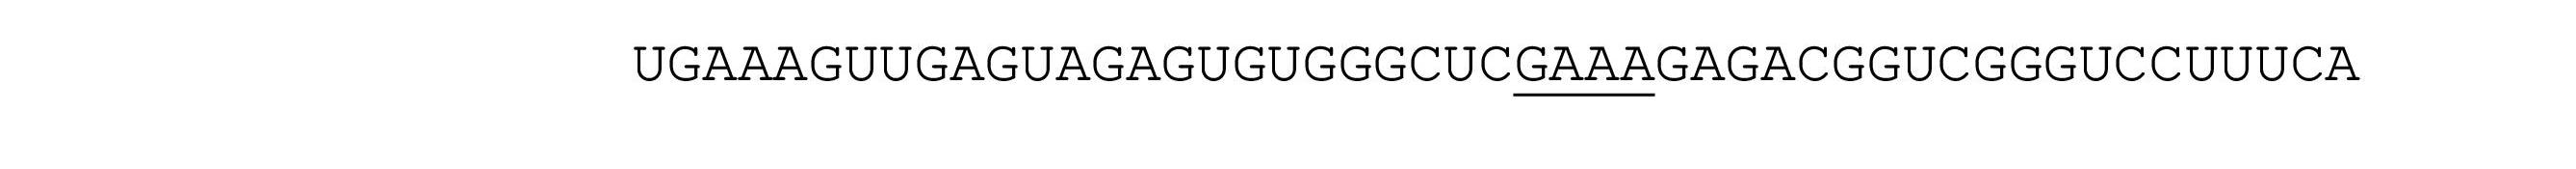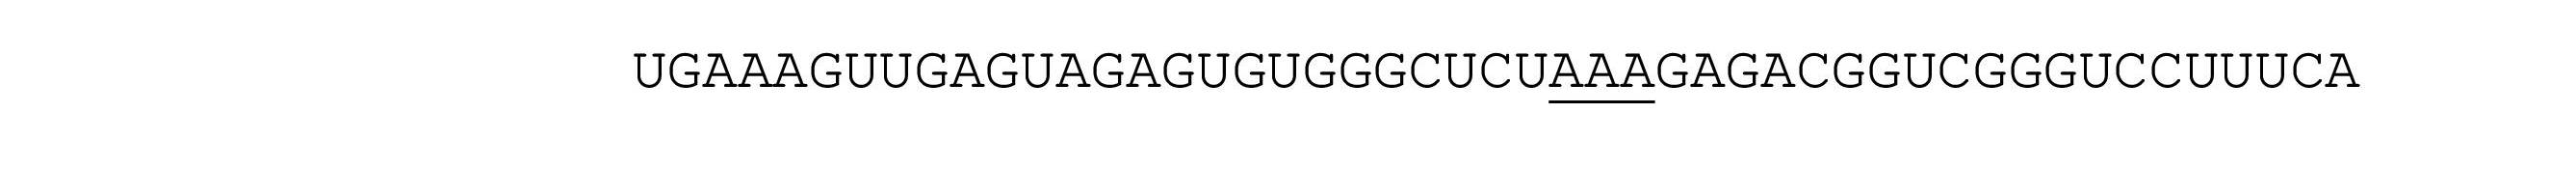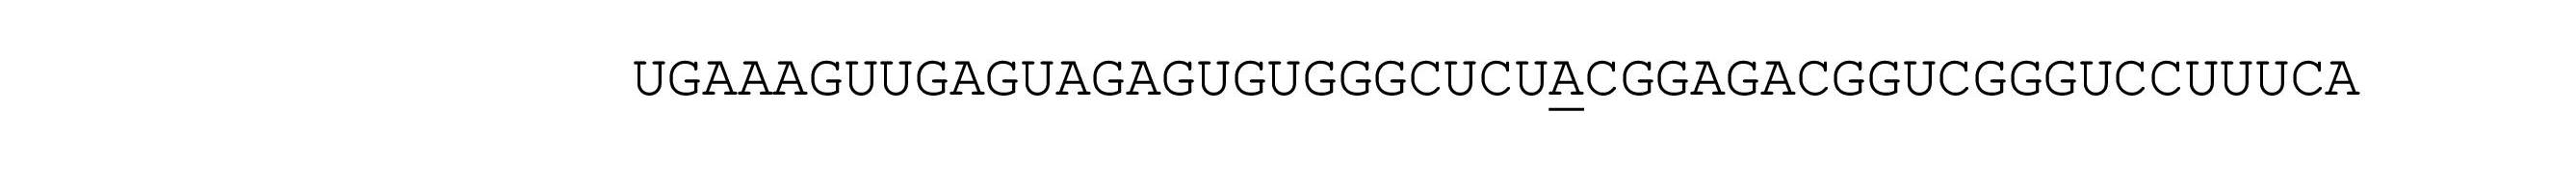JP2022158252A - Rna蛍光体複合体 - Google Patents

Rna蛍光体複合体 Download PDF

Info

Publication number
JP2022158252A
JP2022158252A JP2021063014A JP2021063014A JP2022158252A JP 2022158252 A JP2022158252 A JP 2022158252A JP 2021063014 A JP2021063014 A JP 2021063014A JP 2021063014 A JP2021063014 A JP 2021063014A JP 2022158252 A JP2022158252 A JP 2022158252A
Authority
JP
Japan
Prior art keywords
rna
oligonucleotide
dfhbi
broccoli
seq
Prior art date
Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
Pending
Application number
JP2021063014A
Other languages
English (en)
Inventor
祐一 古旗
Yuichi FURUHATA
Current Assignee (The listed assignees may be inaccurate. Google has not performed a legal analysis and makes no representation or warranty as to the accuracy of the list.)
National Institute of Advanced Industrial Science and Technology AIST
Original Assignee
National Institute of Advanced Industrial Science and Technology AIST
Priority date (The priority date is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the date listed.)
Filing date
Publication date
Application filed by National Institute of Advanced Industrial Science and Technology AIST filed Critical National Institute of Advanced Industrial Science and Technology AIST
Priority to JP2021063014A priority Critical patent/JP2022158252A/ja
Publication of JP2022158252A publication Critical patent/JP2022158252A/ja
Pending legal-status Critical Current

Links

Images

Landscapes

  • Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)

Abstract

【課題】 高輝度かつ抗褪色性の蛍光RNAレポーターシステムを提供する。【解決手段】 (1)5’→3’方向に:UGAAAからなる第1の末端オリゴヌクレオチド;GUHGAGUDGMGUGUGからなる第1の蛍光体結合オリゴヌクレオチド;およびGGCUCからなるヌクレオチド配列または前記ヌクレオチド配列において1~3個のヌクレオチドが置換または挿入されたヌクレオチド配列からなる第1の中央オリゴヌクレオチドを含む第1のRNA分子;ならびに(2)5’→3’方向に:前記第1の中央オリゴヌクレオチドと少なくとも80%の配列相補性を有するヌクレオチド配列からなる第2の中央オリゴヌクレオチド;GGUCGGGUCCからなる第2の蛍光体結合オリゴヌクレオチド;およびUUUCAからなる第2の末端オリゴヌクレオチドを含む第2のRNA分子を含んでなる、RNAアプタマー。【選択図】 なし

Description

本発明は、RNA蛍光体複合体およびそれを作製するためのRNAアプタマーに関する。
蛍光性低分子と、それを特異的に認識する発蛍光性RNAアプタマーとを用いた蛍光RNAレポーターシステムは、近年注目されている技術である。蛍光RNAレポーターは、GFPのような蛍光タンパク質のRNA模倣体であり、RNAの検出や可視化、特には生細胞内RNAイメージングのための強力なツールとなり得る。最初に報告された蛍光RNAレポーターシステムは、GFPの蛍光団の模倣体DFHBIと発蛍光性RNAアプタマーSpinachとを用いたものである(非特許文献1)。Spinach/DFHBI複合体は、インビトロにおいては、非常に弱い励起光を照射することよりGFPと同等以上の蛍光特性を示したが、低マグネシウムイオン濃度下における蛍光強度は微弱であり、かつ、強い励起光照射によっては瞬時に褪色してしまうため、細胞内における使用には適しない。2014年には、低マグネシウムイオン濃度下における蛍光強度をある程度改善したBroccoli/DFHBI-1Tシステムが報告された(非特許文献2)。しかし、Broccoli/DFHBI-1T複合体の蛍光強度も、生細胞内RNAイメージングのためには依然として不十分である。そのため、より高輝度かつ抗褪色性の蛍光RNAレポーターシステムの開発が望まれている。
Paige,J.S. et al.,(2011),Science,333(6042):642-646 Filonov,G.S. et al.,(2014),Journal of the American Chemical Society,136(46):16299-16308
本発明は、生細胞内RNAイメージングに適用可能な、高輝度かつ抗褪色性の蛍光RNAレポーターシステムを提供することを目的としてなされたものである。
これまでに報告されているSpinach/DFHBIまたはBroccoli/DFHBI-1Tシステムに基づく蛍光RNAレポーターシステムはいずれも、DFHBIまたはDFHBI-1Tに対する特異的認識能を獲得するための共通のステムループ構造に基づいて構築されていた。発明者らは、Broccoli/DFHBI-1Tシステムに基づきつつも、上記改変上の制限を取り除くことにより、高輝度かつ抗褪色性の蛍光RNAレポーターを作出することに成功した。
すなわち、本発明は、一実施形態によれば、(1)5’→3’方向に:UGAAAからなる第1の末端オリゴヌクレオチド;GUHGAGUDGMGUGUG(配列番号1)からなる第1の蛍光体結合オリゴヌクレオチド、ここで、Hは、A、CまたはUであり、Dは、A、GまたはUであり、Mは、AまたはCであり;およびGGCUCからなるヌクレオチド配列または前記ヌクレオチド配列において1~3個のヌクレオチドが置換または挿入されたヌクレオチド配列からなる第1の中央オリゴヌクレオチドを含む第1のRNA分子;ならびに(2)5’→3’方向に:前記第1の中央オリゴヌクレオチドと少なくとも80%の配列相補性を有するヌクレオチド配列からなる第2の中央オリゴヌクレオチド;GGUCGGGUCC(配列番号2)からなる第2の蛍光体結合オリゴヌクレオチド;およびUUUCAからなる第2の末端オリゴヌクレオチドを含む第2のRNA分子を含んでなり;ここで、前記第1の末端オリゴヌクレオチドおよび前記第2の末端オリゴヌクレオチドが対合して第1のステム領域を形成し、前記第1の蛍光体結合オリゴヌクレオチドおよび前記第2の蛍光体結合オリゴヌクレオチドが一緒に蛍光体結合モチーフを形成し、前記第1の中央オリゴヌクレオチドおよび前記第2の中央オリゴヌクレオチドが対合して第2のステム領域を形成する、RNAアプタマーを提供するものである。
前記第1の中央オリゴヌクレオチドと前記第2の中央オリゴヌクレオチドは、少なくとも4ヌクレオチド長のスペーサーオリゴヌクレオチドにより連結されていることが好ましい。
前記スペーサーオリゴヌクレオチドは、4~10ヌクレオチド長であることが好ましく、テトラループ配列を含むことが好ましい。
前記テトラループ配列は、UNCG、CUUGおよびAGNNからなる群から選択されることが好ましく、ここで、Nは、A、C、GまたはUである。
前記第2のステム領域は、ミスマッチまたはバルジを含んでもよい。
上記RNAアプタマーは、UGAAAGUUGAGUAGAGUGUGGGCUCCUUGGAGACGGUCGGGUCCUUUCA(配列番号28)を含んでなることが好ましい。
また、本発明は、一実施形態によれば、上記RNAアプタマーと、HBI誘導体とを含んでなるRNA蛍光体複合体を提供するものである。
前記HBI誘導体は、DFHBIまたはDFHBI-1Tであることが好ましい。
本発明に係るRNA蛍光体複合体は、従来のRNA蛍光体複合体を大きく上回る蛍光強度および抗褪色性を有する。また、本発明に係るRNA蛍光体複合体は、マグネシウムイオン依存性、熱安定性、フォールディング効率などの、蛍光RNAレポーターとしての性能に関連するその他の重要なパラメーターについても、従来のRNA蛍光体複合体を上回る。そのため、本発明に係るRNA蛍光体複合体は、生細胞内RNAイメージングのためのレポーターシステムとして有用である。
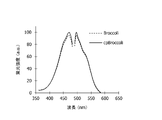
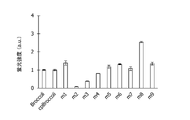
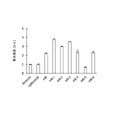
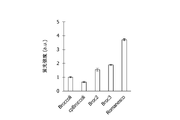
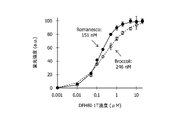
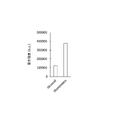
図1は、発蛍光性RNAアプタマーBroccoliと、その循環置換変異体cpBroccoliの一次構造を示す図である。 図2は、BroccoliおよびcpBroccoliの蛍光特性を示す図である。 図3は、cpBroccoliにおいて第1のステム領域(ステムB’/B)を変更した変異体m1~m9の蛍光強度を示すグラフである。 図4は、cpBroccoliのm8変異体に基づく変異体m8-1~m8-6の蛍光強度を示すグラフである。 図5は、cpBroccoliのm8-1変異体においてループ配列等を変更した変異体m8-1-1~m8-1-12の蛍光強度を示すグラフである。 図6は、cpBroccoli変異体であるRomanescoの一次構造を示す図である。 図7は、Romanescoおよび既報のBroccoli変異体の蛍光強度を示すグラフである。 図8は、Romanesco変異を導入したBroccoliの蛍光強度を示すグラフである。 図9は、BroccoliおよびRomanescoの励起スペクトルを示す図である。 図10は、BroccoliおよびRomanescoの蛍光スペクトルを示す図である。 図11は、BroccoliおよびRomanescoの褪色速度を示すグラフである。 図12は、BroccoliおよびRomanescoのDFHBI-1Tに対する親和性を示すグラフである。 図13は、BroccoliおよびRomanescoのマグネシウムイオン依存性を示すグラフである。 図14は、BroccoliおよびRomanescoの熱安定性を示すグラフである。 図15は、BroccoliおよびRomanescoのフォールディング効率を示すグラフである。 図16は、BroccoliまたはRomanescoを組み入れたtRNAを発現する細胞の蛍光顕微鏡像を示す図である。 図17は、BroccoliまたはRomanescoを組み入れたtRNAを発現する細胞のフローサイトメトリー解析により得られたスキャッタグラムである。 図18は、BroccoliまたはRomanescoを組み入れたtRNAを発現する細胞の蛍光強度を示すグラフである。
以下、本発明を詳細に説明するが、本発明は本明細書中に説明した実施形態に限定されるものではない。
本発明は、第一の実施形態によれば、(1)5’→3’方向に:UGAAAからなる第1の末端オリゴヌクレオチド;GUHGAGUDGMGUGUG(配列番号1)からなる第1の蛍光体結合オリゴヌクレオチド、ここで、Hは、A、CまたはUであり、Dは、A、GまたはUであり、Mは、AまたはCであり;およびGGCUCからなるヌクレオチド配列または前記ヌクレオチド配列において1~3個のヌクレオチドが置換または挿入されたヌクレオチド配列からなる第1の中央オリゴヌクレオチドを含む第1のRNA分子;ならびに(2)5’→3’方向に:前記第1の中央オリゴヌクレオチドと少なくとも80%の配列相補性を有するヌクレオチド配列からなる第2の中央オリゴヌクレオチド;GGUCGGGUCC(配列番号2)からなる第2の蛍光体結合オリゴヌクレオチド;およびUUUCAからなる第2の末端オリゴヌクレオチドを含む第2のRNA分子を含んでなり;ここで、前記第1の末端オリゴヌクレオチドおよび前記第2の末端オリゴヌクレオチドが対合して第1のステム領域を形成し、前記第1の蛍光体結合オリゴヌクレオチドおよび前記第2の蛍光体結合オリゴヌクレオチドが一緒に蛍光体結合モチーフを形成し、前記第1の中央オリゴヌクレオチドおよび前記第2の中央オリゴヌクレオチドが対合して第2のステム領域を形成する、RNAアプタマーである。
本実施形態のRNAアプタマーは、第1の構成部分として、UGAAAからなる第1の末端オリゴヌクレオチドおよびUUUCAからなる第2の末端オリゴヌクレオチドが対合することにより形成される、第1のステム領域を含む。
本実施形態のRNAアプタマーは、第2の構成部分として、GUHGAGUDGMGUGUG(配列番号1)からなる第1の蛍光体結合オリゴヌクレオチドおよびGGUCGGGUCC(配列番号2)からなる第2の蛍光体結合オリゴヌクレオチドにより形成される蛍光体結合モチーフを含む。ここで、配列番号1のヌクレオチドにおいて、Hは、A、CまたはUであり、Dは、A、GまたはUであり、Mは、AまたはCである。
本実施形態のRNAアプタマーにおける蛍光体結合モチーフは、Broccoliまたはその変異体の蛍光体結合モチーフに基づいている。したがって、本実施形態において「蛍光体」とは、GFP由来の蛍光体4-ヒドロキシベンジリデンイミダゾリノン(HBI)の誘導体を意味する。HBI誘導体には、例えば、DFHBI((Z)-4-(3,5-ジフルオロ-4-ヒドロキシベンジリデン)-1,2-ジメチル-1H-イミダゾール-5(4H)-オン)、DFHBI-1T((Z)-4-(3,5-ジフルオロ-4-ヒドロキシベンジリデン)-2-メチル-1-(2,2,2-トリフルオロエチル)-1H-イミダゾール-5(4H)-オン)、DFHO(4-(3,5-ジフルオロ-4-ヒドロキシベンジリデン)-1-メチル-5-オキソ-4,5-ジヒドロ-1H-イミダゾール-2-カルバルデヒドオキシム)、BI((Z)-3-((1H-ベンゾ[d]イミダゾール-4-イル)メチル)-5-(3,5-ジフルオロ-4-ヒドロキシベンジリデン)-2-メチル-3,5-ジヒドロ-4H-イミダゾール-4-オン)などが挙げられるが、これらに限定されない。本実施形態のRNAアプタマーにおける蛍光体結合モチーフは、任意のHBI誘導体と結合するものであってよいが、好ましくはDFHBIまたはDFHBI-1Tと結合するものである。
本実施形態のRNAアプタマーは、第3の構成部分として、第1の中央オリゴヌクレオチドおよび第2の中央オリゴヌクレオチドが対合することにより形成される、第2のステム領域を含む。ここで、「対合する」とは、2つのオリゴヌクレオチド間で塩基対が形成されることを意味しており、塩基対には、G:CおよびA:Uのみならず、ゆらぎ塩基対(G:U)も含まれ得る。
本実施形態のRNAアプタマーにおける第2のステム領域は、Broccoliの骨格に基づいており、Broccoliの骨格と同様の二本鎖構造が形成されればよい。すなわち、本実施形態のRNAアプタマーにおける第1の中央オリゴヌクレオチドは、GGCUCからなるヌクレオチド配列または前記ヌクレオチド配列において1~3個のヌクレオチドが置換または挿入されたヌクレオチド配列からなる。置換または挿入されるヌクレオチドの種類および位置は、特に限定されず、第1の中央オリゴヌクレオチドと第2の中央オリゴヌクレオチドとが対合して二本鎖を形成できる限り任意であってよい。
第2の中央オリゴヌクレオチドは、第1の中央オリゴヌクレオチドと少なくとも70%、80%、90%、または100%の配列相補性を有するヌクレオチド配列からなる。言い換えれば、本実施形態のRNAアプタマーにおける第2の中央オリゴヌクレオチドは、第1の中央オリゴヌクレオチドと第2の中央オリゴヌクレオチドとが対合して二本鎖を形成できることを限度として、第1の中央オリゴヌクレオチドに対して完全に相補的な配列において、例えば3個以下、2個または1個のヌクレオチドが置換されたものであってよい。なお、配列の相補性は、当分野における慣用の計算アルゴリズム(NCBI BLASTなど)を用いて計算することができる。
さらに、本実施形態のRNAアプタマーにおける第2のステム領域は、第1の中央オリゴヌクレオチドと第2の中央オリゴヌクレオチドとが対合して二本鎖を形成できることを限度として、例えば1個、2個または3個のミスマッチまたはバルジを任意の位置に含んでもよい。
本実施形態のRNAアプタマーにおける第2のステム領域は、好ましくは、Broccoliの対応する骨格部分と同一である。すなわち、第1の中央オリゴヌクレオチドはGGCUCからなることが好ましく、第2の中央オリゴヌクレオチドはGAGACからなることが好ましい。
本実施形態のRNAアプタマーは、第4の構成部分として、少なくとも4ヌクレオチド長のスペーサーオリゴヌクレオチドを含むことができ、これにより、前記第1の中央オリゴヌクレオチドと前記第2の中央オリゴヌクレオチドとが連結されてよい。言い換えれば、本実施形態のRNAアプタマーは、分割された2つのRNA分子から構成されてもよいし、スペーサーオリゴヌクレオチドにより連結された単一のRNA分子から構成されてもよい。本実施形態のRNAアプタマーにおいて、スペーサーオリゴヌクレオチドは、上記第1~第3の構成部分の構造が維持される限り任意の長さであってよく、例えば、4~50ヌクレオチド長、4~30ヌクレオチド長、4~20ヌクレオチド長、または4~10ヌクレオチド長であってよい。また、スペーサーオリゴヌクレオチドは、上記第1~第3の構成部分の構造が維持される限り任意の配列を有してよく、任意の構造を形成してよいが、ループ構造またはヘアピン構造を形成することが好ましい。
本実施形態のRNAアプタマーにおけるスペーサーオリゴヌクレオチドは、好ましくは4~10ヌクレオチド長であり、テトラループ配列を含む。本実施形態のRNAアプタマーにおけるテトラループ配列は、特に限定されず、例えば、GNRA、UNCG、U-TURN、CUUG、AGNNなどの任意の公知のテトラループ配列(Nは、A、C、GまたはUである)であってよい。本実施形態のRNAアプタマーにおけるテトラループは、好ましくは、UNCG、CUUGまたはAGNNであり、特に好ましくはUUCG、AGUUまたはCUGGである。
本実施形態において、第1の末端オリゴヌクレオチド、第1の蛍光体結合オリゴヌクレオチド、第1の中央オリゴヌクレオチド、スペーサーオリゴヌクレオチド、第2の中央オリゴヌクレオチド、第2の蛍光体結合オリゴヌクレオチドおよび第2の末端オリゴヌクレオチドは、直接連結されることが好ましいが、それぞれの連結部に、1または2ヌクレオチドが挿入されてもよい。挿入されるヌクレオチドは、上記各構成部分の構造が維持される限り、任意の種類であってよい。
本実施形態のRNAアプタマーの特に好ましい具体例としては、UGAAAGUUGAGUAGAGUGUGGGCUCCUUGGAGACGGUCGGGUCCUUUCA(配列番号28)を含んでなるRNAアプタマーを挙げることができる。
Broccoliなどの蛍光RNAアプタマーのアプリケーションは種々報告されており(Neubacher,S. and Hennig, S.,2019,Angew. Chemie Int. Ed.,58(5):1266-1279)、本実施形態のRNAアプタマーは、そのような公知の蛍光RNAアプタマーと同様に使用することができる。すなわち、本実施形態のRNAアプタマーは、HBI誘導体と結合して複合体を形成でき、かつ、複合体の発蛍光能が維持されることを限度として、第1および/もしくは第2のRNA分子の5’ならびに/または3’末端に任意の長さおよび配列からなる核酸が付加されてよい。
本実施形態のRNAアプタマーは、当分野において公知の方法により、化学合成または遺伝子工学的手法により生合成することができる。例えば、本実施形態のRNAアプタマーは、鋳型となるDNAを調製し、それをRNAポリメラーゼにより転写することによって製造することができる。なお、本実施形態のRNAアプタマーは、すべてRNAから構成されてもよいし、その一部に修飾RNAが含まれてもよい。修飾RNAとしては、例えば、ホスホロチオエート化RNA、ボラノホスフェート化RNA、2’-O-メチル化RNA、2’-F化RNA、2’,4’-BNA(別名LNA(Locked Nucleic Acid))、などが挙げられる。
本実施形態のRNAアプタマーは、それをコードする核酸を含む発現ベクターを用いることにより、細胞内で発現させてもよい。発現ベクターは、RNAアプタマーを導入する細胞の種類に応じて、適切なウイルスベクターまたは非ウイルスベクターを選択して用いることができる。
本実施形態のRNAアプタマーは、Broccoliなどの公知の蛍光RNAアプタマーよりもHBI誘導体に対して高い結合親和性を有する。さらに、本実施形態のRNAアプタマーとHBI誘導体との複合体は、Broccoliなどの公知の蛍光RNAアプタマーとHBI誘導体との複合体と比較して、増大した蛍光強度および安定性を有する。そのため、本実施形態のRNAアプタマーとHBI誘導体とを組み合わせて用いることにより、従来よりも高輝度かつ抗褪色性の発蛍光性RNAアプタマーレポーターシステムを提供することができる。
本発明は、第二の実施形態によれば、上記RNAアプタマーとHBI誘導体とを含んでなるRNA蛍光体複合体である。本実施形態における「HBI誘導体」は、第一の実施形態において定義したものと同様である。本実施形態のRNA蛍光体複合体は、DFHBIまたはDFHBI-1Tを含んでなることが好ましく、配列番号3のRNA配列を含むRNAアプタマーとDFHBIまたはDFHBI-1Tとを含んでなることが特に好ましい。
本実施形態のRNA蛍光体複合体は、上記RNAアプタマーおよびHBI誘導体を接触させることにより調製することができる。具体的には、上記RNAアプタマーおよびHBI誘導体を含む溶液を調製し、一定時間インキュベートすればよい。溶液は、例えば、1~100mMのHEPES(pH6.0~9.0)や1~100mMのTrisなどの当分野において一般的に用いられる緩衝液に対し、RNAアプタマーおよびHBI誘導体を添加して調製すればよい。溶液におけるRNAアプタマーの終濃度は、例えば、1nM~100μMの範囲であってよい。溶液におけるHBI誘導体の終濃度は、例えば、1nM~100μMの範囲であってよい。インキュベート時間は適宜決定することができ、例えば、1分~1時間であってよい。
あるいは、上記RNAアプタマーおよびHBI誘導体を細胞に導入することにより、本実施形態のRNA蛍光体複合体を細胞内で形成させてもよい。この場合、RNAアプタマーは、リポフェクション、マイクロインジェクション、エレクトロポレーションなどの周知の核酸導入方法により細胞に導入されてもよいし、RNAアプタマーをコードする核酸を含む発現ベクターを細胞に導入して発現させてもよい。HBI誘導体は、例えば、HBI誘導体を添加した緩衝液または培地中で細胞をインキュベートすることにより細胞に導入され得る。緩衝液および培地には、細胞の種類に応じて適切なものを用いることができる。緩衝液または培地におけるHBI誘導体の終濃度は、例えば、100nM~100μMの範囲であってよい。インキュベート時間は適宜決定することができ、例えば、1分~2時間であってよい。
本実施形態のRNA蛍光体複合体は、高輝度かつ抗褪色性の発蛍光性RNAアプタマーレポーターであり、細胞内環境でも優れた蛍光活性、フォールディング効率および安定性を示す。そのため、本実施形態のRNA蛍光体複合体は、生細胞内RNAイメージングのために有用である。
以下に実施例を挙げ、本発明についてさらに説明する。なお、これらは本発明を何ら限定するものではない。
<1.循環置換変異体cpBroccoliの調製>
Broccoli改変上の制限を取り除くために、Broccoliのループ配列(UUCG)の上流の配列と下流の配列とを相互に置き換えた循環置換変異体cpBroccoliを作製した。BroccoliおよびcpBroccoliの一次構造を図1に示す。cpBroccoliでは、Broccoliの25番目のウラシルが5’末端となり、20番目のアデニンが3’末端となる(図1、太字)。

Broccoli(配列番号3)またはcpBroccoli(配列番号4)のcDNA配列にT7プロモーターの相補配列を付加した配列からなるDNAを、Sigma-Aldrichに委託して合成した。これを鋳型として、T7プライマー(配列番号34)およびKlenow Flagment(タカラバイオ)を用いて、二本鎖DNAを調製した。ScriptMAX Thermo T7 Transcription Kit(東洋紡)を用いたインビトロ転写反応(37℃、150分間)により、二本鎖DNAからRNAを合成した。得られたRNAを、Micro Bio-Spin P-30カラム(バイオ・ラッド)を用いて精製した。変性尿素ポリアクリルアミドゲル電気泳動により、RNAが正しい長さを有することを確認した。
Broccoli(配列番号3)
Figure 2022158252000001
cpBroccoli(配列番号4)
Figure 2022158252000002
1μMのRNAおよび10μMのDFHBI-1T(Lucerna)/HEPESバッファー(40mM HEPES(pH7.4),100mM KCl,1mM MgCl)を調製し、37℃で30分間インキュベートした。その後、分光蛍光光度計(FP-8300,日本分光)を用いて、25℃で蛍光を測定した。測定には以下のパラメータを用いた:励起波長470nm,スリット幅5nm,蛍光波長505nm,スリット幅5nm。
結果を図2に示す。cpBroccoliの蛍光強度、励起スペクトルおよび蛍光スペクトルは、Broccoliと同等であった。
<2.cpBroccoliへの変異導入>
cpBroccoliの第1のステム領域(図1、ステムB’/B)の配列を変更した変異体m1~m9を上記1と同様の手順により調製し、DFHBI-1Tとの複合体を調製し、それらの蛍光を測定した。変異体m1~m9の配列を以下に示す。下線は、cpBroccoliからの変異箇所を示す。
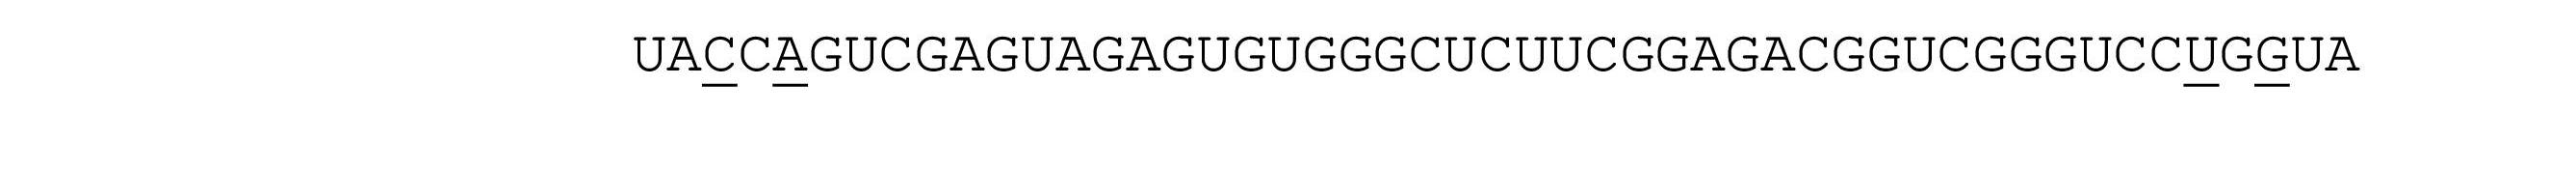
変異体m1(配列番号5)
Figure 2022158252000003
変異体m2(配列番号6)
Figure 2022158252000004
変異体m3(配列番号7)
Figure 2022158252000005
変異体m4(配列番号8)
Figure 2022158252000006
変異体m5(配列番号9)
Figure 2022158252000007
変異体m6(配列番号10)
Figure 2022158252000008
変異体m7(配列番号11)
Figure 2022158252000009
変異体m8(配列番号12)
Figure 2022158252000010
変異体m9(配列番号13)
Figure 2022158252000011
結果を図3に示す。ステムB’/BがUGAAA/UUUCAに置換された変異体m8とDFHBI-1Tとの複合体が、大幅に上昇した蛍光強度を示した。
次いで、変異体m8に、先行研究(Ageely,E.A. et al.,(2016),ACS Chem.Biol.,11:2398-2406)に開示されたBroccoliの蛍光強度を上昇させる変異を、単独または複数組み合わせてさらに導入した変異体m8-1~m8-6を、上記1と同様の手順により調製し、DFHBI-1Tとの複合体を調製し、蛍光を測定した。変異体m8-1~m8-6の配列を以下に示す。下線は、変異体m8からの変異箇所を示す。
変異体m8-1(配列番号14)
Figure 2022158252000012
変異体m8-2(配列番号15)
Figure 2022158252000013
変異体m8-3(配列番号16)
Figure 2022158252000014
変異体m8-4(配列番号17)
Figure 2022158252000015
変異体m8-5(配列番号18)
Figure 2022158252000016
変異体m8-6(配列番号19)
Figure 2022158252000017
結果を図4に示す。変異体m8に対してC8U変異のみを導入した変異体m8-1とDFHBI-1Tとの複合体が最も強い蛍光強度を示した。
最後に、変異体m8-1の蛍光体結合モチーフにさらなる変異を導入した、またはループ領域を自然界に存在するRNAループ配列により置換した、変異体m8-1-1~m8-1-12を、上記1と同様の手順により調製し、DFHBI-1Tとの複合体を調製し、蛍光を測定した。変異体m8-1-1~m8-1-12の配列を以下に示す。下線は、変異体m8-1からの変異箇所を示す。
変異体m8-1-1(配列番号20)
Figure 2022158252000018
変異体m8-1-2(配列番号21)
Figure 2022158252000019
変異体m8-1-3(配列番号22)
Figure 2022158252000020
変異体m8-1-4(配列番号23)
Figure 2022158252000021
変異体m8-1-5(配列番号24)
Figure 2022158252000022
変異体m8-1-6(配列番号25)
Figure 2022158252000023
変異体m8-1-7(配列番号26)
Figure 2022158252000024
変異体m8-1-8(配列番号27)
Figure 2022158252000025
変異体m8-1-9(Romanesco)(配列番号28)
Figure 2022158252000026
変異体m8-1-10(配列番号29)
Figure 2022158252000027
変異体m8-1-11(配列番号30)
Figure 2022158252000028
変異体m8-1-12(配列番号31)
Figure 2022158252000029
結果を図5に示す。UNCG型ループを有する変異体m8-1、AGNN型ループを有する変異体m8-1-8、CUUG型ループを有する変異体m8-1-9、GNRA型ループを有する変異体m8-1-10、およびU-TURN型ループを有する変異体m8-1-11など、幅広い種類の変異体とDFHBI-1Tとの複合体が、Broccoli/DFHBI-1T複合体よりも高い蛍光強度を示した。この結果から、ループ配列が蛍光強度に与える影響は小さいことが確認された。とりわけ、変異体m8-1-9/DFHBI-1T複合体が最も高い蛍光強度を示した(Broccoli/DFHBI-1T複合体の蛍光強度の3.7倍)。そこで、変異体m8-1-9を「Romanesco」と命名し、Romanesco/DFHBI-1T複合体の蛍光特性をさらに解析することとした。Romanescoの一次構造を図6に示す。図6中、太字はcpBroccoliからの変異部分を示す。
比較例として、先行研究(Ageely,E.A. et al.,(2016),ACS Chem.Biol.,11:2398-2406)に開示された高輝度Broccoli変異体Broc2およびBroc3を、上記1と同様の手順により調製し、DFHBI-1Tとの複合体を調製し、蛍光を測定した。
Broc2(配列番号32)
Figure 2022158252000030
Broc3(配列番号33)
Figure 2022158252000031
結果を図7に示す。Broccoli/DFHBI-1T複合体の蛍光強度と比較して、Broc2/DFHBI-1T複合体は1.54倍、Broc3/DFHBI-1T複合体は1.89倍の蛍光強度を示したのに対し、Romanesco/DFHBI-1T複合体は3.70倍の蛍光強度を示した。この結果から、Romanesco/DFHBI-1T複合体は、従来公知の高輝度Broccoli変異体/DFHBI-1T複合体よりも、はるかに高輝度であることが確認された。
さらに、比較例として、Romanescoにおける変異に対応する変異をBroccoliに対して導入した変異体(Broccoli Romanesco mutation)およびm8-1変異体における変異に対応する変異をBroccoliに対して導入した変異体(Broccoli m8-1 mutation)を、上記1と同様の手順により調製し、DFHBI-1Tとの複合体を調製し、蛍光を測定した。変異体Broccoli Romanesco mutationおよびBroccoli m8-1 mutationの配列を以下に示す。下線は、Broccoliからの変異箇所を示す。
Broccoli Romanesco mutation(配列番号34)
Figure 2022158252000032
Broccoli m8-1 mutation(配列番号35)
Figure 2022158252000033
結果を図8に示す。Broccoli Romanesco mutation/DFHBI-1T複合体およびBroccoli m8-1 mutation/DFHBI-1T複合体のいずれも、Broccoli/DFHBI-1T複合体よりも低い蛍光強度を示した。この結果から、上記実施例において見出された変異の組み合わせは、cpBroccoliの蛍光強度を大幅に増強する一方、Broccoliの蛍光強度を増強するためには有効ではないことが明らかとなった。
<3.Romanesco/DFHBI-1T複合体の特性>
(3-1)励起スペクトルおよび蛍光スペクトル
Romanesco/DFHBI-1T複合体とBroccoli/DFHBI-1T複合体の励起スペクトルおよび蛍光スペクトルを、上記1と同様の手順により測定した。
励起スペクトルを図9、蛍光スペクトルを図10に示す。Romanesco/DFHBI-1T複合体は、Broccoli/DFHBI-1T複合体の約4倍の蛍光強度を示す一方、スペクトルの形状はBroccoli/DFHBI-1T複合体と類似していることが確認された。
(3-2)褪色速度
RomanescoまたはBroccoli(1μM)およびDFHBI-1T(50nM)を含むHEPESバッファーを調製し、37℃で30分間インキュベートした。その後、分光蛍光光度計(FP-8300,日本分光)を用いて、25℃で蛍光を測定した。蛍光測定には微量測定用キュベット(50μl)を用い、励起光のスリット幅を最大(20 nm)に設定して、溶液全体に励起光を照射した。測定には以下のパラメータを用いた:励起波長470nm,スリット幅20nm,蛍光波長505nm,スリット幅1nm。得られたデータセットをExcelを使用して解析し、各タイムポイントにおける蛍光強度を0秒における蛍光強度に対して正規化した。
結果を図11に示す。測定開始後0.3秒間におけるBroccoli/DFHBI-1T複合体の褪色速度は0.49ユニット/秒であったのに対し、Romanesco/DFHBI-1T複合体の褪色速度は0.39ユニット/秒であった。この結果から、Romanesco/DFHBI-1T複合体は、Broccoli/DFHBI-1T複合体よりも褪色しにくいことが明らかとなった。
(3-3)DFHBI-1T親和性
50nMのRomanescoまたはBroccoliを含むHEPESバッファーに対して異なる濃度のDFHBI-1Tを添加し、37℃で30分間インキュベートした。その後、マイクロプレートリーダー(Infinite 200 Pro、Tecan)を用いて25℃で蛍光強度を測定した。測定には以下のパラメータを用いた:励起波長470nm,スリット幅9nm,蛍光波長510nm,スリット幅20nm。得られたデータセットを、Excelのソルバーツールを使用して4パラメーターロジスティックモデルに基づく曲線にフィッティングし、DFHBI-1Tの濃度増加と蛍光強度増加の関数から複合体の解離定数(K)を決定した。
結果を図12に示す。Broccoli/DFHBI-1TのKは246nMであったのに対し、Romanesco/DFHBI-1TのKは151nMであった。この結果から、RomanescoはBroccoliよりもDFHBI-1Tに対して高い親和性を有することが確認された。
(3-4)マグネシウムイオン依存性
RomanescoまたはBroccoli(1μM)およびDFHBI-1T(10μM)を、異なる濃度のMgClを含む40mM HEPES(pH7.4),100mM KClバッファー中で混合した。37℃で30分間インキュベート後、マイクロプレートリーダー(Infinite 200 Pro、Tecan)を用いて25℃で蛍光強度を測定した。測定には以下のパラメータを用いた:励起波長470nm,スリット幅9nm,蛍光波長510nm,スリット幅20nm。
結果を図13に示す。1mMのMgCl存在下での蛍光強度と比較して、MgCl不在下でのBroccoli/DFHBI-1T複合体の蛍光強度は41%であったのに対し、Romanesco/DFHBI-1T複合体の蛍光強度は65%であった。この結果から、RomanescoはBroccoliよりもマグネシウムイオン依存性が低いことが明らかとなった。
(3-5)熱安定性
RomanescoまたはBroccoli(1μM)およびDFHBI-1T(10μM)を含むHEPESバッファーを調製し、37℃で30分間インキュベートした。その後、リアルタイムPCRシステム(ABI7500、サーモフィッシャー・サイエンティフィック)を用いて蛍光を測定した。測定には以下のパラメータを用いた:温度範囲10~90℃、温度間隔0.3℃、加熱速度4℃/分。得られたデータセットをExcelを使用して解析し、最大値での強度に対して正規化した。
結果を図14に示す。50%蛍光強度を与える温度が、Broccoli/DFHBI-1T複合体では45℃であったのに対し、Romanesco/DFHBI-1T複合体では47℃であった。この結果から、Romanesco/DFHBI-1T複合体の方がBroccoli/DFHBI-1T複合体よりも熱安定性が高いことが明らかとなった。
(3-6)フォールディング効率
複合体のフォールディング効率を評価するために、次の2条件の溶液の蛍光強度を比較した:微量(1μM)のRomanescoまたはBroccoliに対して過剰量(20μM)のDFHBI-1Tを供給する(条件1);微量(1μM)のDFHBI-1Tに対して過剰量(20μM)のRomanescoまたはBroccoliを供給する(条件2)。37℃で30分間インキュベート後、マイクロプレートリーダー(Infinite 200 Pro、Tecan)を用いて25℃で蛍光強度を測定した。測定には以下のパラメータを用いた:励起波長470nm,スリット幅9nm,蛍光波長510nm,スリット幅20nm。条件1の蛍光強度を条件2の蛍光強度で割ることにより、複合体が正しくフォールディングされ、DFHBI-1Tの蛍光を活性化できるRomanescoまたはBroccoliの割合を決定した。
結果を図15に示す。Broccoliは全量のうち14%しか正しく複合体をフォールディングしていないのに対し、Romanescoは全量のうち21%が正しく複合体をフォールディングした。この結果から、RomanescoはBroccoliよりもDFHBI-1Tとの複合体を効率よく形成することが明らかとなった。
以上の結果から、蛍光強度、褪色速度、DFHBI-1T親和性、マグネシウムイオン依存性、熱安定性およびフォールディング効率のすべての特性において、RomanescoはBroccoliよりも優れていることが確認された。
<4.哺乳類細胞におけるRomanesco/DFHBI-1T複合体の蛍光強度>
(4-1)RNA発現プラスミドの調製
pcPURU6ベクター(Nucleic Acids Res.,2005;33(15):1-9)をバックボーンベクターとして使用し、tRNALysスキャフォールドに組み込まれたRomanescoもしくはBroccoli(それぞれ「tRomanesco」、「tBroccoli」と表記する)またはtRNALysをU6プロモーターによって発現するプラスミドを構築した。表1に記載のオリゴヌクレオチド(FASMACに委託して合成;小文字はIn-Fusion反応に必要な相同領域を示す)を用いたKlenow反応によりインサート断片を調製し、In-Fusion HD Cloning Kit(タカラバイオ)により、tRomanesco(配列番号46)、tBroccoli(配列番号47)またはtRNALys(配列番号48)を含むインサート全長を得た。得られたインサート全長をPCRで増幅し、In-Fusion HD Cloning Kitを用いて、BfuA1で切断したpcPURU6にクローニングした。
表1.tRomanesco、tBroccoliまたはtRNALys調製のためのオリゴヌクレオチド
Figure 2022158252000034
tRomanesco(配列番号46)
Figure 2022158252000035
tBroccoli(配列番号47)
Figure 2022158252000036
tRNALys(配列番号48)
Figure 2022158252000037
トランスフェクションコントロールには、pCX-CR(pCX-EGFP(FEBS Lett.,1997;407(3):313-9)中のEGFP遺伝子をmCherry遺伝子に置換したもの)を作製し、使用した。具体的には、mCherry遺伝子(Nat.Biotechnol.,2004;22(12):1567-72)をPCRで増幅し、In-Fusion反応によりpCXベクターに組み込んだ。PCRで増幅されたmCherry遺伝子の配列をDNAシーケンス解析によって確認した。
(4-2)生細胞蛍光イメージング
HEK293T細胞(理研BRC)を、ポリリジンでコーティングされた35mmマルチウェルガラスボトムディッシュ(Matsunami Glass)に約5.0×10細胞/ウェルの濃度で播種し、10%FBS(Hyclone Laboratories)および1%Antibiotic-Antimycotic(100X)(サーモフィッシャー・サイエンティフィック)を添加したダルベッコ改変イーグル培地(高グルコース)(ナカライテスク)中、5%CO、37℃で培養した。FuGENE HD試薬(プロメガ)を用いて、試薬に添付のプロトコルに従って、上で調製した発現ベクターを細胞にトランスフェクションした。RNA発現プラスミドとpCX-CRプラスミドの比率を4:1、DNAの総量を0.2μg/ウェルとした。トランスフェクションの2日後、イメージングを行う30分前に、培養液を除去し、25mMのHEPES(pH7.4)、5mMのMgSO、20μMのDFHBI-1Tおよび2μg/mlのHoechst33342を含むHBSSに置換した。蛍光画像を、蛍光顕微鏡(IX81、オリンパス)を用いて取得し、ImageJ 1.52aソフトウェア(NIH)で分析した。
結果を図16に示す。図中の小窓には、同視野のヘキスト染色像を示す。tRomanesco発現細胞からは、tBroccoli発現細胞よりもはるかに強い蛍光が観察された。
(4-3)フローサイトメトリー
上記(4-2)と同様の手順により、RNA発現プラスミドとpCX-CRプラスミドをトランスフェクションしたHEK293T細胞を用意した。トランスフェクションの2日後、細胞をPBSで洗浄し、2%FBSおよび40μMのDFHBI-1Tを含むPBSに懸濁した。BD Accuri C6 Plus Flow Cytometer(BD Biosciences)により、FITC(533/30nm)とPE(585/40nm)の2つのフィルターと488nmレーザーを使用して、細胞懸濁液を分析した。得られたデータをFlowJo(BD Biosciences)により分析した。蛍光強度上位5%の細胞の平均蛍光強度を計算した。
フローサイトメトリー解析により得られたスキャッタグラムを図17に示す。tRomanesco発現細胞は、tBroccoli発現細胞よりも高い蛍光強度を示す細胞を高い比率で含むことが確認された。また、tRomanesco発現細胞およびtBroccoli発現細胞の、蛍光強度上位5%の細胞の平均蛍光強度を図18に示す。tRomanesco発現細胞は、tBroccoli発現細胞よりも平均して3倍の蛍光強度を示すことが確認された。

Claims (8)

  1. (1)5’→3’方向に、
    UGAAAからなる第1の末端オリゴヌクレオチド、
    GUHGAGUDGMGUGUG(配列番号1)からなる第1の蛍光体結合オリゴヌクレオチド、ここで、Hは、A、CまたはUであり、Dは、A、GまたはUであり、Mは、AまたはCであり、および
    GGCUCからなるヌクレオチド配列または前記ヌクレオチド配列において1~3個のヌクレオチドが置換または挿入されたヌクレオチド配列からなる第1の中央オリゴヌクレオチド
    を含む第1のRNA分子、ならびに
    (2)5’→3’方向に、
    前記第1の中央オリゴヌクレオチドと少なくとも80%の配列相補性を有するヌクレオチド配列からなる第2の中央オリゴヌクレオチド、
    GGUCGGGUCC(配列番号2)からなる第2の蛍光体結合オリゴヌクレオチド、および
    UUUCAからなる第2の末端オリゴヌクレオチド
    を含む第2のRNA分子
    を含んでなり、
    ここで、前記第1の末端オリゴヌクレオチドおよび前記第2の末端オリゴヌクレオチドが対合して第1のステム領域を形成し、
    前記第1の蛍光体結合オリゴヌクレオチドおよび前記第2の蛍光体結合オリゴヌクレオチドが一緒に蛍光体結合モチーフを形成し、
    前記第1の中央オリゴヌクレオチドおよび前記第2の中央オリゴヌクレオチドが対合して第2のステム領域を形成する、
    RNAアプタマー。
  2. 前記第1の中央オリゴヌクレオチドと前記第2の中央オリゴヌクレオチドとが、少なくとも4ヌクレオチド長のスペーサーオリゴヌクレオチドにより連結されてなる、請求項1に記載のRNAアプタマー。
  3. 前記スペーサーオリゴヌクレオチドが4~10ヌクレオチド長であり、テトラループ配列を含む、請求項2に記載のRNAアプタマー。
  4. 前記テトラループ配列が、UNCG、CUUGおよびAGNNからなる群から選択され、ここで、Nは、A、C、GまたはUである、請求項3に記載のRNAアプタマー。
  5. 前記第2のステム領域がミスマッチまたはバルジを含む、請求項1~4のいずれか1項に記載のRNAアプタマー。
  6. UGAAAGUUGAGUAGAGUGUGGGCUCCUUGGAGACGGUCGGGUCCUUUCA(配列番号28)を含んでなる、請求項1~5のいずれか1項に記載のRNAアプタマー。
  7. 請求項1~6のいずれか1項に記載のRNAアプタマーと、HBI誘導体とを含んでなるRNA蛍光体複合体。
  8. 前記HBI誘導体がDFHBIまたはDFHBI-1Tである、請求項7に記載のRNA蛍光体複合体。
JP2021063014A 2021-04-01 2021-04-01 Rna蛍光体複合体 Pending JP2022158252A (ja)

Priority Applications (1)

Application Number Priority Date Filing Date Title
JP2021063014A JP2022158252A (ja) 2021-04-01 2021-04-01 Rna蛍光体複合体

Applications Claiming Priority (1)

Application Number Priority Date Filing Date Title
JP2021063014A JP2022158252A (ja) 2021-04-01 2021-04-01 Rna蛍光体複合体

Publications (1)

Publication Number Publication Date
JP2022158252A true JP2022158252A (ja) 2022-10-17

Family

ID=83639259

Family Applications (1)

Application Number Title Priority Date Filing Date
JP2021063014A Pending JP2022158252A (ja) 2021-04-01 2021-04-01 Rna蛍光体複合体

Country Status (1)

Country Link
JP (1) JP2022158252A (ja)

Citations (1)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
WO2020116446A1 (ja) * 2018-12-03 2020-06-11 国立研究開発法人科学技術振興機構 蛍光発生核酸分子、及び標的rnaの蛍光標識方法

Patent Citations (1)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
WO2020116446A1 (ja) * 2018-12-03 2020-06-11 国立研究開発法人科学技術振興機構 蛍光発生核酸分子、及び標的rnaの蛍光標識方法

Non-Patent Citations (2)

* Cited by examiner, † Cited by third party
Title
RNA, vol. 14, JPN6024036157, 2008, pages 1154 - 1163, ISSN: 0005455707 *
関西バイオ医療研究会 第11回講演会(産業技術総合研究所関西センター研究講演会)要旨集, JPN6024045126, 2020, pages 6, ISSN: 0005455708 *

Similar Documents

Publication Publication Date Title
US9745588B2 (en) Transcription terminator sequences
Autour et al. Fluorogenic RNA Mango aptamers for imaging small non-coding RNAs in mammalian cells
AU2016316027B2 (en) Systems and methods for selection of gRNA targeting strands for Cas9 localization
CN104968786B (zh) 核糖核酸调节子组合物以及使用方法
WO2020247883A2 (en) Deep mutational evolution of biomolecules
KR20230028375A (ko) 원형 rna 번역을 구동하는 유전 요소와 이를 사용하는 방법
US20140228556A1 (en) Ribozyme for identifying modification on rna sequence and rna cleavage method using same
US20100221787A1 (en) Isothermal amplification method and dna polymerase used in the same
Jung et al. RNA stability enhancers for durable base-modified mRNA therapeutics
WO2020085510A1 (ja) Staple核酸を利用したタンパク質翻訳反応の抑制法
Vopálenský et al. Messenger RNAs of yeast virus-like elements contain non-templated 5′ Poly (A) leaders, and their expression is independent of eIF4E and Pab1
US9834762B2 (en) Modified polymerases for replication of threose nucleic acids
WO2023230991A1 (zh) 新型闭合线性双链dna的体外制备技术
CN102533742B (zh) 一种双链核苷酸序列、含其的重组质粒及其构建方法
Hussein et al. In silico design of CMV promoter binding oligonucleotides and their impact on inhibition of gene expression in Chinese hamster ovary cells
JP5800176B2 (ja) 哺乳動物細胞内で目的遺伝子の増幅構造を制御し、高発現させる方法
US20230203503A1 (en) L-rna aptamers and methods of identifying the same
Greenwald et al. DragonRNA: Generality of DNA-primed RNA-extension activities by DNA-directed RNA polymerases
Lumba Splice Site Recognition During Early Spliceosome Assembly
WO2017010568A1 (ja) Rna-タンパク質複合体とその使用
WO2018003339A1 (ja) 細胞特異的にヌクレアーゼを制御する方法
EP3960862A1 (en) Rna-aptamer-sensors
CN108998473B (zh) G四聚体共价偶联dna分子和dna自转染试剂盒及应用
TW202603170A (zh) 促進rna轉譯的utr
JP2025505148A (ja) 核酸ガイド型ニッカーゼ融合タンパク質

Legal Events

Date Code Title Description
A621 Written request for application examination

Free format text: JAPANESE INTERMEDIATE CODE: A621

Effective date: 20240111

A977 Report on retrieval

Free format text: JAPANESE INTERMEDIATE CODE: A971007

Effective date: 20241018

A131 Notification of reasons for refusal

Free format text: JAPANESE INTERMEDIATE CODE: A131

Effective date: 20241108

A601 Written request for extension of time

Free format text: JAPANESE INTERMEDIATE CODE: A601

Effective date: 20250106

A521 Request for written amendment filed

Free format text: JAPANESE INTERMEDIATE CODE: A523

Effective date: 20250221

A02 Decision of refusal

Free format text: JAPANESE INTERMEDIATE CODE: A02

Effective date: 20250513