JP3669927B2 - 癌治療のための自己消滅型ベクター - Google Patents
癌治療のための自己消滅型ベクター Download PDFInfo
- Publication number
- JP3669927B2 JP3669927B2 JP2000562540A JP2000562540A JP3669927B2 JP 3669927 B2 JP3669927 B2 JP 3669927B2 JP 2000562540 A JP2000562540 A JP 2000562540A JP 2000562540 A JP2000562540 A JP 2000562540A JP 3669927 B2 JP3669927 B2 JP 3669927B2
- Authority
- JP
- Japan
- Prior art keywords
- recombinant vector
- vector according
- recombinase
- sequence
- promoter
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Fee Related
Links
Images




Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/85—Vectors or expression systems specially adapted for eukaryotic hosts for animal cells
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/85—Vectors or expression systems specially adapted for eukaryotic hosts for animal cells
- C12N15/86—Viral vectors
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
- A61K38/16—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- A61K38/43—Enzymes; Proenzymes; Derivatives thereof
- A61K38/45—Transferases (2)
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P35/00—Antineoplastic agents
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/65—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression using markers
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K48/00—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2740/00—Reverse transcribing RNA viruses
- C12N2740/00011—Details
- C12N2740/10011—Retroviridae
- C12N2740/13011—Gammaretrovirus, e.g. murine leukeamia virus
- C12N2740/13041—Use of virus, viral particle or viral elements as a vector
- C12N2740/13043—Use of virus, viral particle or viral elements as a vector viral genome or elements thereof as genetic vector
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Genetics & Genomics (AREA)
- Engineering & Computer Science (AREA)
- Chemical & Material Sciences (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Biotechnology (AREA)
- Organic Chemistry (AREA)
- Wood Science & Technology (AREA)
- General Engineering & Computer Science (AREA)
- Zoology (AREA)
- Biomedical Technology (AREA)
- General Health & Medical Sciences (AREA)
- Molecular Biology (AREA)
- Plant Pathology (AREA)
- Microbiology (AREA)
- Biochemistry (AREA)
- Biophysics (AREA)
- Physics & Mathematics (AREA)
- Animal Behavior & Ethology (AREA)
- Medicinal Chemistry (AREA)
- Veterinary Medicine (AREA)
- Public Health (AREA)
- Pharmacology & Pharmacy (AREA)
- Epidemiology (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Immunology (AREA)
- Gastroenterology & Hepatology (AREA)
- Virology (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- General Chemical & Material Sciences (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Medicines Containing Material From Animals Or Micro-Organisms (AREA)
- Enzymes And Modification Thereof (AREA)
Description
【発明の属する技術分野】
本発明は、組換えベクター、本発明の組換えベクターを含む薬学的組成物、および本発明の組換えベクターを腫瘍患者の治療に使用すること、および形質導入細胞に関する。
【0002】
【従来の技術】
これまで良性および悪性の腫瘍は、腫瘍の外科的摘出等の侵襲性の処置あるいは細胞増殖抑止剤の投与または患部器官への放射線の照射などの保存的処置、あるいは上記方法の組み合わせを用いて主に治療されてきた。これらの治療的可能性についても、外科手術法の弛み無い進歩と細胞増殖抑止剤の分野でのすばらしい発展によって、すでに大きな成功がおさめられている。
【0003】
しかしながら、上記の治療法による腫瘍の治療における成否は変動が大きく、成果の程は予測不能である。さらに、上記の3つのいずれの方法も深刻な欠点を伴う。例えば、外科手術そのもののために、腫瘍の外科的除去およびおこりうる健康な組織の切除は、患者に甚大な影響を与える。細胞増殖抑止剤の投与および腫瘍の放射線照射を標的細胞に、適切に限局できることはむしろ例外的であり、したがって、健康な細胞、および健康な組織をも処置に晒すことがほとんど不可避である。細胞増殖抑止剤の投与とはすなわち有糸分裂の阻害であって、例えば萎縮性脱毛症などの不快な副作用を持つ。細胞増殖抑止治療および放射線治療のどちらも生殖適齢期の患者の不稔性を必然的に招来する。
【0004】
上記の欠陥のために、腫瘍細胞を標的化した様式で治療薬、特に細胞増殖抑止剤を輸送し、該細胞内部に取り込ませる方法が既に試みられてきた。このような試みの一例として、腫瘍細胞特異的抗原に結合する抗体に細胞増殖抑止剤をカップリングさせる方法がある。このようなアプローチは理論的に魅力的であるが、例えば、十分な量の抗体を取得すること困難であることなどかなりの問題があり、そしてまた、提供される外来タンパク質に対する免疫反応を引き起こす危険性が少なからずある。
【0005】
もうひとつのアプローチは、腫瘍細胞の発生段階における転写因子の役割に関する知見に基づくものである。少数の核内転写因子が細胞内ゲノムの完全性をモニターする働きがあることは広く知られている。ゲノムDNAが損傷を受けると、前記転写因子は修復に必要な細胞周期停止を誘発するか、あるいは修復不能な損傷の場合にはアポトーシスを誘起する。したがって、該転写因子は重要な腫瘍抑制機能を有する。転写因子p53、とりわけp53の機能障害にともなう癌の発生について最近多くの報告がある(Levine, 1997)。「ジーン・ターゲティング」の手段により生産されたp53-/-表現型のマウスが上述の関連性の証明となっている。そのタンパク質の不在が自然発生腫瘍の発生の増加をもたらす(Donehowerら、1992)。さらに、前記マウスの助けによって、p53がアポトーシスの誘発に主要な役割を果たすことを証明することができた(Loweら、1994)。
【0006】
放射線照射や化学療法など、従来の腫瘍治療において重要な役割を演じているのが、まさにこのp53が介在するアポトーシスなのである(Loweら、1994)。変異されたp53を持つ(p53mut)タイプの癌がそれに伴い、細胞増殖抑止剤および放射線治療に対して抵抗性であり、そのため多くは予後不良である。ヒトにおいては、全ての癌タイプのうち50-80%においてp53の変異ないし欠失が観察されている(Levineら、1991)。これらは常にDNA結合ドメインに関するものであり、その結果としてp53のトランスアクティベーターとしての機能を喪失させるものである。
【0007】
正常細胞と形質転換細胞とにおけるp53分子の遺伝的差異が、腫瘍細胞を選択的に殺す(selective elimination)のに最近利用されてきた。p53欠損細胞においてのみ増殖可能であるアデノウイルス変異体は、ヌードマウスでの実験で移植されたヒトp53mut腫瘍を選択的かつ効果的に破壊した(Bischoffら、1996)。しかしながら、ヒトにおいては、既にアデノウイルスに対する免疫が存在することが大きな問題となりうる。全人口の大多数は、既にアデノウイルスに感染して免疫化されているので、治療を行おうとする患者のほとんどは治療用ウイルスが殺傷能を発揮できる前にこれを排除してしまうであろう。このようにアデノウイルスベクターは、遺伝子療法に用いるには限られた範囲でしか適していない。
【0008】
【発明が解決しようとする課題】
前記従来技術から出発して、本発明の目的は、腫瘍細胞を標的化した様式で、それと戦う方法および手段を提供することであった。
【0009】
【課題を解決するための手段】
本発明に従えば、この目的は以下の(a)〜(c)を含んで成る組換えベクターにより達成される。
(a)リコンビナーゼをコードする配列と、それに機能するべく連結され、1つまたは複数の転写因子による活性化に依存する最小プロモーターMPと、転写因子結合部位と、選択肢としてポリアデニル化配列とを含む、少なくとも1つの第1転写カセット;
(b)自殺遺伝子と、それに機能するべく連結されたプロモーターPと、選択肢としてポリアデニル化配列とを含む、少なくとも1つの第2転写カセット;そして
(c)リコンビナーゼ標的配列を含む5’隣接配列および/または3’隣接配列。
【0010】
本発明のベクターは、自殺遺伝子を細胞に該ベクターによって導入し、健康な細胞にあってはリコンビナーゼの発現により前記遺伝子がただちに排除され、一方、腫瘍細胞中にあっては不活性転写因子により活性化され、(i)自殺タンパク質の発現により、また、(ii)アンチセンスRNAの転写により、さらにまた、(iii)細胞変性のウイルスの生産によるかして、細胞死に導き、腫瘍細胞を標的とし、選択的に殺すことを可能とする。
【0011】
【発明の実施の形態】
本発明の記述中において、「ベクター」なる用語は、デオキシリボ核酸、またはリボ核酸から構成される直鎖状もしくは環状の核酸分子を指す。本発明のベクターの出発材料となりうる、遺伝子治療に適するベクターは公知である。ウイルスにパッケージングすることができ、容易に形質導入法により細胞に導入しやすいため、ウイルスまたはレトロウイルスのゲノムに由来するベクターが好ましいペクターである。ウイルスに由来しないベクターもまた使用可能であるが、さらにトランスフェクションの技法が必要となる。適当なベクターは、例えば完全に合成されたベクター、または弱毒化細菌によって形質導入されたベクターであろう。
【0012】
「複製能力」とは、ベクターが宿主細胞内で増殖する能力を意味する。哺乳動物細胞に関しては、非常に高い複製能力は、例えばアデノウイルスや、特にモロニー・マウス白血病ウイルス(MoMuLV)のマウス白血病ウイルスMuLVのようなレトロウイルスに見出される。本発明は、一般に真核細胞内で複製能力をもつベクターを含む。ベクターがレトロウイルスである場合は、感染性のあるレトロウイルスが好適である。
【0013】
「転写カセット」とは、タンパク質をコードする配列とは別個に、例えばプロモーター、または転写因子結合部位およびポリアデニル化配列を有する最小プロモーターなどの、必要な制御領域を含む核酸ユニットである。第1転写カセットは、第2転写カセットに対して5'または3'に位置している。
【0014】
「最小プロモーター」とは、天然または合成のプロモーターもしくはエンハンサーであって、特異的な転写因子の存在下にあってのみ遺伝子発現が活性化されるものである。それは少なくとも1つの天然または合成の転写因子結合部位を含む。
【0015】
「転写因子結合部位」とは、最小プロモーターを活性化するのに必要な転写因子が結合することができる天然または合成の核酸配列である。
【0016】
「リコンビナーゼ」とは、特定の標的塩基配列を認識、切断し、かつ同配列をお互いに組換える天然または合成の酵素である。実例として、P1大腸菌ファージからのCreリコンビナーゼ(SternbergおよびHamilton、1981)およびサッカロミセス属菌(S. cerevisiae)からのFlpリコンビナーゼ(BroachおよびHicks、1980)があげられる。
【0017】
「標的配列」とは、リコンビナーゼが特異的に認識することができる天然または合成の配列である。実例として、P1大腸菌ファージからのloxP配列(Guら、1993; SauerおよびHenderson 1988、StembergおよびHamilton、1991)およびサッカロミセス属菌からFRT配列(BroachおよびHicks、1980、GolicおよびLindquist、1989; O'Gormanら、1991)があげられる。
【0018】
「自殺遺伝子」とは、転写そしておそらく発現によって細胞死に至らしめる核酸配列である。本発明のベクターにおいては転写カセットの一部として、すなわち、プロモーターおよび選択肢としてポリアデニル化配列と組み合わされて存在する。
【0019】
本発明の一側面では、自殺遺伝子が必須遺伝子に部分的または完全に相補的となるべく意図される。転写によって生産される自殺遺伝子のmRNAは、必須細胞性遺伝子とハイブリダイズすることができる。mRNAハイブリダイゼーションの結果、必須細胞性遺伝子の翻訳が阻止され、そして/または、リボヌクレアーゼ(RNase)Hが活性化され、続いて細胞死が起こる。前記必須細胞性遺伝子は、サイクリン遺伝子およびBcl−2のような抗アポトーシスタンパク質などのうちから選ぶことができる。
【0020】
本発明に従って、意図される自殺遺伝子のさらなる作用機序は、自殺遺伝子が細胞を殺すセムリキ森林熱ウイルスなどの細胞変性ウイルスをコードする。さらに、自殺遺伝子は、自殺タンパク質をコードする核酸配列を含んでもよい。
【0021】
「自殺タンパク質」とは、直接または間接に細胞死に至らしめる天然または合成のポリペプチド産物である。その間接作用は、例えば、非毒性の薬物前駆体との相互作用に基づき、前駆体が細胞死の引き金を引くことができる毒性薬物に転化される。自殺タンパク質は、インフルエンザ赤血球凝集素や外来の主要組織適合性(MHC)抗原のような抗原であってもよい。前記直接作用は、ここで腫瘍細胞に対する免疫反応の刺激に基づくものである。
【0022】
本発明のベクターを用いると、欠損転写因子を持つ腫瘍細胞を標的化した、直接的な様式で殺すことが初めて可能となる。本発明のベクターの選択性の基礎は、第1転写因子によってコードされるリコンビナーゼがそのままの転写因子を有する細胞においてのみ発現されるということである。欠損転写因子を有する腫瘍細胞では、最小プロモーターに関係する転写因子結合部位への転写因子の結合はない。最小プロモーターの活性化には転写因子の結合が必要であるため、転写が起こらず、したがって第一転写カセットによってコードされる遺伝子、すなわちリコンビナーゼの発現はない。これとは対照的に、第2転写カセットのコーディング配列、すなわち自殺遺伝子は、それに機能すべく連結されたプロモーターが、転写因子によるいかなる活性化とも独立しているため転写されることができる。発現された自殺タンパク質は、薬物前駆体と接触するに至った後に、該前駆体を代謝し、それにより毒性薬物の生産に寄与する。前記代謝産物は、最終的に個々の患部細胞の死をもたらす。あるいはまた、細胞タイプ特異的アンチセンスRNAまたはウイルスが細胞死を招来することも可能である。
【0023】
これと対照的に、健康な細胞すなわちそのままの転写因子を有する細胞においては、該因子が転写因子結合部位に結合でき、したがって第1転写カセットによってコードされるタンパク質、すなわちリコンビナーゼが発現される。リコンビナーゼの標的配列については、例えばベクターによって予め用意され、転写カセットの領域を挟むが、標的配列の間に位置する第1、第2転写カセットを伴う領域は、ただちに削除される。レトロウイルスベクターの場合、LTRおよびかくしてリコンビナーゼの標的配列は、インテグレーションによって2重になる。標的配列の間に位置する領域もまた、削除される。健康な細胞の場合、残るものは、標的配列のコピーのみ、あるいは選択肢として、ベクターの以前のインテグレーション部位としてのLTRとである。
【0024】
上述の転写因子としては、トランスアクティベーター能力の制限または完全な削除をもたらす欠損を有するいかなる転写因子であってよい。DNA結合そしてそのためトランス活性がもはや起こらないように、腫瘍細胞においてそのDNA結合ドメインがしばしば相対的に変化される、転写因子の例としては、前記p53因子があげられる。
【0025】
ヒトの腫瘍においては、p53の変異は常にDNA結合ドメインに見出される。これはしばしばDNA結合能、したがって該タンパク質のトランスアクティベーター機能の喪失を引き起こす。数々のプロモーターにおいてp53結合コンセンサス配列が発見され、それらの特性が調べられている。さらに、p53がとりわけp21(WAF1)(el-Deiryら、1994)、bax(MiyashitaおよびReed、1995)およびIGF−BP3(Buckbinderら、1995)の発現を調節する。このようなp53結合コンセンサス配列は、例えば、PGモチーフ(CCTGCCTGGACTTGCCTG)(el-Deiryら、1992)である。本発明者らおよび他は、最小プロモーター(MP)に接続された該モチーフ(PGn)がレポーター遺伝子の発現によってp53を誘導可能にすることを示してきた。このような誘導は、変異p53によっては不可能である。これは、とりわけPGn−CMVMin−CAT(クロラムフェニコール・アセチルトランスフェラーゼ)の組合せ(Kernら、1992)およびpg13−SV40Min−SEAP(分泌型アルカリフォスファターゼ)の組合せに対して実証されてきた。本発明の目的には、p53結合コンセンサス配列pg13が好ましい。
【0026】
本発明の1つの実施形態において、前記近接配列(flanking sequence)は、実質的にリコンビナーゼ標的配列からなる。これらは天然または組換えリコンビナーゼによって認識される、天然または合成の配列であってよい。
【0027】
好ましい実施の形態において、本発明のベクターは、レトロウイルスに由来する。レトロウイルスはRNAウイルスであって、その複製には中間体としてDNAが含まれる。前記ウイルス性RNAゲノムは、短い反復配列(リピート、R)および非反復配列(ユニーク配列、U5およびU3)に挟まれ、これらはDNA合成、ウイルスゲノムの宿主ゲノムへの組込み(インテグレーション)、転写およびRNAプロセッシングを制御する。これらの制御領域は、ウイルス粒子の最も重要な構成タンパク質、すなわちgagおよびenvと、さらに粒子にパッケージされる酵素群(pol、プロテアーゼ、逆転写酵素およびインテグラーゼ)をそれらの間に提供する。感染後すぐに、前記ウイルスRNAは逆転写酵素によりDNAに翻訳される。インテグレーションに先立ち、ウイルスゲノムの末端配列は、レトロウイルスゲノムが長い末端反復配列(ロング・ターミナル・リピート、LTR)に挟まれるように重複し、これらはそれぞれがU3領域、RおよびU5領域を含む。直鎖状分子はその後、ゲノムに組み込まれる。
【0028】
逆転写されたウイルスゲノムは、宿主ゲノムに組み込まれた後はプロウイルスと呼ばれる。プロウイルスは宿主細胞DNAと共に、複製され、細胞遺伝子と同様に転写される。プロウイルスの転写は、5’LTRのU3領域中にあるプロモーターおよびエンハンサー配列により制御される。ポリアデニル化された転写物は、5’LTR中のU3とRの間の移行部に始まり、ポリアデニル化シグナルを含む3’LTRのRに終焉する。
【0029】
特異的制御配列がLTR中に残っていれば、レトロウイルスゲノムは、逆転写、インテグレーション、および粒子形成に必要なタンパク質を発現する細胞で複製する能力を損なうことなく外来DNAと交換することができる。複製機構に必要とされる酵素を供給するには、ベクターDNAがレトロウイルス全ゲノムまたはヘルパーウイルスを含む細胞株にトランスフェクトされる。前記ヘルパーウイルスは、U5領域とgagとの間の欠失のために粒子中に集合することはできない。その結果、組換え転写産物のみがウイルス粒子中にパッケージされ、細胞から放出される。前記の技術的可能性から、遺伝子治療用のベクターとしてはレトロウイルスベクターが好適である。
【0030】
レトロウイルスに由来するベクターの場合、5’および/または3’近接配列は、完全なまたは部分的なLTR領域を含む。少なくとも一つのリコンビナーゼ標的配列は、ここで好ましくは5’および/または3’LTRのU3またはU5領域中にある。リコンビナーゼ標的配列がLTRの外側にある場合は、少なくとも2つのリコンビナーゼ標的配列が必要である。しかしながら、転写カセットは好ましくはLTRの外側にある。非レトロウイルスベクターの場合は、少なくとも2つのリコンビナーゼ標的配列を用意する。
【0031】
第1転写カセットは、とりわけリコンビナーゼをコードする配列を含む。好ましくは、おそらく基礎をなすウイルスゲノムと転写方向が同じになるように配置する。
【0032】
リコンビナーゼ活性を有する、天然または合成のいかなるタンパク質もリコンビナーゼとして使用できる。好適な実施の形態では、第1転写カセットによってコードされるリコンビナーゼは、Creリコンビナーゼである。該Creリコンビナーゼは、元来大腸菌ファージP1で同定されたが、その特性がよく研究されている。好適な実施の形態では、Creリコンビナーゼの標的配列は、loxP配列である。Creリコンビナーゼに認識されうる人工のリコンビナーゼ標的配列も使用することができる。代わりの実施の形態では、Flpがリコンビナーゼとして用いられる。
【0033】
Flpは、元来パン酵母菌(S. cerevisiae)に由来する。これは、S. cerevisiaeのFRT配列を優先的に認識する。かわって、これらの標的配列は、リコンビナーゼFlpによって認識される人工的な認識配列で置換できる。
【0034】
転写因子に依存する、いかなるプロモーターも最小プロモーターとして使用することができる。好適な実施の形態は、ΔCMV(GossenおよびBujard、1992)またはΔMMTV(Hoffmannnら、1997)を使用する。これらのプロモーターは、切り詰めたサイトメガロウイルスまたはマウス乳腺腫瘍ウイルスプロモーターであり、転写因子によりトランス活性化される。
【0035】
第2転写カセットによってコードされる自殺遺伝子は、チミジンキナーゼ遺伝子である。本発明に従えば、単純ヘルペスウイルスのチミジンキナーゼ(HSV−TK)が特に好ましい。HSV−TKは、例えばガンシクロビルを加えるとこれを転化し、有毒代謝産物とする。しかしながら、非毒性の薬物前駆体から代謝によって有毒薬物を生産することが知られている全てのタンパク質は自殺タンパク質として使用できる。このような自殺タンパク質の例として、さらにシトシンデアミナーゼがあげられる。
【0036】
さらなる好適な実施の形態において、自殺遺伝子は、部分的または完全に必須細胞性遺伝子に相補的である。自殺遺伝子の転写により生成するmRNAは、必須細胞性遺伝子のmRNAにハイブリダイズすることができる(アンチセンス機序)。mRNAハイブリダイゼーションの結果、翻訳が阻止、および/またはリボヌクレアーゼ(RNase)Hの活性化であり、必須細胞性遺伝子の発現を防ぎそして細胞死に至らしめる。例えば、基礎代謝などの必須細胞性遺伝子は当業者に公知である。
【0037】
さらなる好適な実施の形態において、前記自殺遺伝子は、発現によって細胞変性ウイルスを生成することができる。当業者に公知の細胞変性ウイルスは、感染細胞において退行変性、例えば巨核細胞、シンシチウム、封入体、液胞および顆粒の形成、核の変化、細胞溶解などを生じる。細胞変性ウイルスの例としては、セムリキ森林熱ウイルスがあげられる。
【0038】
第2転写カセットは、ウイルスゲノムおよび第1転写カセットと同じ転写方向となるように配置されることが好ましい。第1転写カセットは、第2転写カセットに対して相対的に5’または3’のいずれに位置してもよい。反対向きに配置する場合、これもまた可能であるが、前記第2転写カセットに対して、もう一つのポリアデニル化配列を用意しなければならない。
【0039】
自殺遺伝子のプロモーターとしては、いかなる望ましい強い真核細胞プロモーターも使用できる。好ましいプロモーターは、例えばモロニーマウス白血病ウイルス(MoMuLV)のLTRプロモーターである。当業者であれば、さらに他のプロモーターについても知見を有する。
【0040】
さらなる好適な実施の形態において、本発明のベクターは、選択マーカーカセットを含む。選択マーカーカセットは、例えば、U3領域に挿入することができる。該領域は実行したインテグレーションの証拠となりうる。実施例に例示する選択マーカーカセットは、SV40Puroである。しかしながら、真核細胞において転写され、翻訳されそして当業者に公知である、他の全ての選択マーカーシステムもまた、使用することができる。
【0041】
さらに本発明は、請求項1乃至14、または16のいずれか1つに記載のベクターを含む薬学的組成物に関する。これらの薬学的組成物は、腫瘍治療に有用であり、転写因子の欠損によって特徴付けられる。好適な実施の形態では、治療用組成物中のベクターは、ウイルス粒子にパッケージされる。
【0042】
本発明のベクターは、薬学的組成物中で、好ましくは複製能を持つ。特に、これらは好ましくは、感染性、すなわちさらに細胞に感染できる。
【0043】
本発明のベクターは、腫瘍患者の治療に用いることができる。好適な実施の形態において、本発明は、本発明のベクターを投与し、そして続いてガンシクロビルのような自殺タンパク質により代謝されるべき前駆体を投与することによって、腫瘍細胞を標的化した様式で殺すことになっている。
【0044】
本発明のさらなる主題は、欠損転写因子を含む腫瘍細胞を請求項1乃至14、または16のいずれか1つに記載の組換えベクターで感染させることにより得ることができる形質導入された真核細胞である。
【0045】
図面および以下の実施例は、本発明を説明する。
【0046】
【実施例】
(実施例1) Creが介在する組換えを検出するためのSaos2レポーター細胞株の生産
Creリコンビナーゼ活性がそれによつて検出することができる細胞株を取得するために、ヒトp53欠損Saos2骨肉腫細胞をカルシウムリン酸共沈法(Pearら、1993)によってレポーター構築体pSVpaX1で安定的にトランスフェクトした。
【0047】
前記レポーター構築体pSVpaX1(Buchholzら、1996)は、検出が容易なタンパク質(βガラクトシダーゼ)をコードするLacZ遺伝子からなる。該LacZ遺伝子は、Cre介在型リコンビナーゼが作用して初めてSV40プロモーターによって転写される(図5)。
【0048】
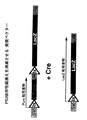
2つのloxP部位に挟まれたピューロマイシンリン酸転移酵素耐性遺伝子は、SV40プロモーターおよびLacZのそれぞれのコーディング配列の間に配置される。SV40プロモーターは、非組換え状態において、耐性遺伝子を転写し、これによりレポーター構築体の選択が可能となる。Creリコンビナーゼの非存在下では、前記ピューロマイシン−リン酸転移酵素配列は、loxP配列の間で除去され、そして前記lacZ遺伝子はSV40プロモーターの制御下に入る。このようにして、Creリコンビナーゼ活性は、細胞中のβ−ガラクトシダーゼの発現(X−Gal染色)により容易に検出できる。
【0049】
pSVpaX1でトランスフェクトされた細胞は、0.5mg/mlのピューロマイシン(シグマ社)で7日間選択された。得られた形質転換細胞は、X−Galでインキュベートしてもバックグラウンド染色を全く示さなかった。Cre発現プラスミドpMC−Creでトランスフェクションすると、明確なlacZ陽性の表現型の形質転換細胞が得られた。
【0050】
(実施例2) p53依存性Cre発現プラスミドの生産
本発明者らは、Cre発現プラスミドの助けで2つの異なる最小プロモーターがp53依存性であることを示した。これらの最小プロモーターは、p53結合モチーフp13(Kernら、1992)であって、その一方が短縮されたサイトメガロウイルス(ΔCMV)プロモーター(GossenおよびBujard、1992)に、他方は短縮されたマウス乳腺腫瘍ウイルス(ΔMMTV)プロモーター(Hoffmannら、1997)に連結されているものからなる。前記2つの発現ベクターを下記の方法でクローニングした。
1. pBluescript(pBS)プラスミドを制限酵素ClaIおよびKlenow酵素で消化し、そしてpU3Cre(Russら、1996)をNheIおよびKlenow酵素で消化する。Cre断片と直鎖状ベクターをライゲーションしpBSCreを得た。
2. pBSCreおよびpGLpg13Seap(C. Rinderele, Asta Medica AG)をSacIおよびEcoRIで消化する。pGLpg13SeapのSacI/EcoRI消化断片のCre5’をpg13断片としてpBSCreにクローニングした。これによりppg13Creを得た。
3. ppg13CreをHindIIIおよびKlenow酵素で消化する。
【0051】
ライゲーション1:合成ΔCMVプロモーター断片(GGC CGG CCT ATA AGC AGA GCT CGT TTA GTG GCC)からppg13ΔCMVCreを得た。 ライゲーション2:ΔMMTVプロモーターのPCR断片(5’プライマー:CCT ATG TTA TTT TGG AAC TTA TCC, 3’プライマー:AGG GCC CTG TTC GGG CGC C)からppg13ΔMMTVCreを得た。
4. 2つの構築体(ppg13ΔCMVCreおよびppg13ΔMMTVCre)をSalIおよびKlenow酵素で消化し、そしてppg13SeapをBamHI,SalIおよびKlenow酵素で消化する。切り出されたポリアデニル化シグナル(pA)をライゲーションした結果、以下の2つのp53依存性Cre発現プラスミドを得た。
− ppg13ΔCMVCrepA
− ppg13ΔMMTVCrepA
p53依存性でCreが介在する組換えを検出するために、p53発現プラスミドpSBC2−p53存在、または非存在下で、Cre発現プラスミドをp53-/- レポーター細胞株Saos2/pSVpax1に一過性にトランスフェクトした。トランスフェクションは、カルシウムリン酸共沈法(Pearら、1993)を用いて標準プロトコールに従い行った。
【0052】
48時間後、βガラクトシダーゼの検出をするため細胞をX−Galで染色した。両方の場合、図6から、p53がレポータープラスミドpSVpax1のCre介在型組換えと、その結果としてβガラクトシダーゼの発現を有意に促進することが明らかに実証された。
【0053】
これらの結果により、生産されたpg13ΔCMVおよびpg13ΔMMTVの2つの最小プロモーターによりCreリコンビナーゼのp53依存的な発現が可能であることが実証された。
【0054】
(実施例3) p53調節、自己消滅型レトロウイルスベクターのクローニング
p53依存性、自己消滅型構築体に導くクローニング法は、以下に簡単に記載される。
1.pBSおよびpGLpg13SeapをHindIIIで消化する。ベクターとpg13SV40断片とのライゲーションし、ppg13SV40を得た。
2.pUC3TK(Russら、1996b)をNheIおよびKlenow酵素で消化し、そしてppg13SV40をSalIおよびKlenow酵素で消化する。ベクターとチミジンキナーゼ(TK)カセットをライゲーションし、pHSVTKpgSV40を得た。
3.pU3CreをNheIおよびKlenow酵素で消化し、pTKpg13SV40をXbaIおよびKlenow酵素で消化する。ベクターとCreをライゲーションし、pHSVTKpgSV40Creを得た。
4.pHSVTKpgSV40CreをNotIおよびKlenow酵素で、次いでXhoIで消化し、そしてpBABEpuro(Russら、1996b)をClaIおよびKlenow酵素で、次いでSalIで消化する。TKpg13SV40CreカセットとpBABE断片とをライゲーションし、pHSVTKpgSV40CreU3RU5を得た。
5.pggSV40CrelxSV40Puro(Russら、1996a)構築体からlxSV40PuroカセットをBamHIおよびClaIにより切り出し、そしてpBSの対応する制限酵素部位にライゲーションした。これによりpBSlxSV40Puroを得た。
6.pHSVTKpgSV40CreU3RU5をNheIで、さらにpBSlxSV40PuroをSpeIおよびXbaIで消化する。lxSV40Puroカセットをレトロウイルスベクターでライゲーションし、pHSVTKpgSV40CreU3lxSV40Puroを得た。
【0055】
以下の方法により、最小プロモーターpg13SV40を最小プロモーターppg13ΔCMVおよびpg13ΔMMTVと交換した。
【0056】
pHSVTKpgSV40CreU3lxSV40PuroプラスミドをBstBIで消化し、EcoRIで部分消化する。ppg13ΔCMVCrepAおよびppg13ΔMMTVCrepAを同じ制限酵素で消化する。それぞれの断片をライゲーションし、以下のp53制御、自己消滅型構築体を得た(図3)。
−pHSVTKpgΔCMVCreU3lxSV40Puro
−pHSVTKpgΔMMTVCreU3lxSV40Puro
【0057】
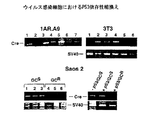
レトロウイルスベクター pHSVTKpgΔCMVCreU3lxSV40PuroおよびpHSVTKpgΔMMTVCreU3lxSV40PuroにおいてもCre/loxP介在性組換えがp53依存的のままであることを確認するために、前記プラスミドをPhoenix細胞に一過性にトランスフェクトし、レトロウイルス粒子にパッケージングした(Pearら、出版中、インターネットウェブページに掲載中)。ウイルスを含む細胞培養上清を、p53を含まないSaos2細胞に感染させた。ピューロマイシン(5μg/ml)中、選択後、プロウイルス保有シングルクローンを単離できた。p53非存在化でも微量のCre発現がある可能性を検証するため、各クローンを20μMのガンシクロビル(GC、Syntex社)中に置いた。プロウイルス発現クローンにおいて、56%および86%がそれぞれの最小プロモーターに依存してGC存在下で死滅したことを表1が示す。全てのGC感受性クローンにおいて、特異的PCR法によりCreDNAが検出できた(図7)。このことは、感染したSaos2クローンの大多数において組換えが起こらなかったことを意味する。さらなる試験で、GC感受性クローンを野生型p53発現プラスミド(pSBC2−p53)で一過性にトランスフェクトした。GC生存細胞について、再びPCR法を用いて組換えのアッセイを行った。図7に例示するように、GC耐性細胞は、もはやCreリコンビナーゼを含んでいなかった。これらの結果から野生型p53がCreリコンビナーゼの転写を活性化することによって、ゲノムからのプロウイルスLTR間に位置する配列を除去できることが明白に実証された。
【0058】
(実施例4) 自己消滅型レトロウイルスベクターによるp53 -/- 細胞の選択的殺傷
内因性p53も同様にベクターのCre発現を活性化できるか否かという問いに答えるために、実施例3に既述したように形質転換マウス線維芽細胞を、同じレトロウイルスで感染させ、プロウイルス保有クローンを単離した。線維芽細胞の一方は、p53ノックアウトマウス(Loweら,1994)由来のp53-/-−1AR.A9細胞であり、他方は少量の野生型p53を発現する従来型NIH3T3細胞である。ピューロマイシン耐性1AR.A9全クローンは、組換えが起こらないため、GC中では100%が死滅したが、NIH3T3細胞クローンの57%が生存した(図7、表1)。DNA試験により、この表現型はCre介在型組換えによりHSV−TKを有するプロウイルスの大多数が除去されたことによるものであることが示された(図4)。
【0059】
表1:ウイルス感染細胞におけるp53依存性ガンシクロビル耐性

nt:未測定
*ピューロマイシン耐性クローンはガンシクロビル(20mM)存在下で、7日間培養し、そして7日間培養後、生存クローン数を測定した。
【0061】
参考文献
Bischoff, J. R., D. H. Kirn, A. Williams, C. Heise, S. Horn, M. Muna, L.Ng, J. A. Nye, A. Sampson-Johannes, A. Fattaey, and F. McCormick. 1996. An adenovirus mutant that replicates selectively in p53-deficient human tumor cells [注を参照せよ]. Science 274,373-6.
Broach, J. R., and J. B. Hicks. 1980. Replication and recombination functions as-sociated with the yeast plasmid, 2p circle. Cell 21, 501-508.
Buchholz, F., L. Ringrose, P. 0. Angrand, F. Rossi, and A. F. Stewart. 1996. Dif-ferent thermostabilities of FLP and Cre recombinases: implications for applied site-specific recombination. Nucleic Acids Res 24, 4256-62.
Buckbinder, L., R. Talbott, S. Velasco-Miguel, 1. Takenaka, B. Faha, B. R.Seizin-ger, and N. Kley. 1 995. Induction of the growth inhibitor IGF-binding protein 3 by p53. Nature 377, 646-9
Donehower, L. A., M. Harvey, B. L. Slagle, M. J. McArthur, C. A. Montgomery, Jr., J.S. Butel, and A. Bradley. 1992. Mice deficient for p53 are developmentally normal but susceptible to spontaneous tumours. Nature 356, 215-21.
el-Deiry, W. S., S. E. Kern, J. A. Pietenpol, K. W. Kinzler, and B. Vogelstein. 1992. Definition of a consensus binding site for p53. Nat Genet 1, 45-9.
el-Deiry, W.S., J. W. Harper, P. M. O'Connor, V. E. Velculescu, C. E. Canman, J. Jackman, J. A. Pietenpol, M. Burell, D. E. Hill, Y. Wang, and et al. 1994. WAF1 /CIPI is induced in p53-mediated Gl arrest and apoptosis. Cancer Res 54, 1169-74.
Golic, K. G., and S. Lindquist. 1989. The FLP recombinase of yeast catalyzes sIite-specific recombination in the Drosophila genome. Cell 59, 499-509.
Gossen, M., and H. Bujard. 1992. Tight control of gene expression in mammalian cells by tetracycline-responsive promoters. Proc Natl Acad Sci U S A 89,5547-5551.
Gu, H., Y. Zou, and K. Rajewsky. 1993. Independent control of immunoglobulin switch recombination at individual switch regions evidenced through Cre-/oxP -mediated gene targeting. Cell 73, 1155-1164.
Hoffmann, A., M. Villalba, L. Journot, and D. Spengler. 1997. A novel tetracycline-dependent expression vector with low basal expression and potent regulatory properties in various mammalian cell lines. Nucleic Acids Res 25, 1078-1079.
Kern, S., J. Pietenpol, S. Thiagalingam, A. Seymour, K. Kinzier, and B. Vogelstein. 1992. Oncogenic forms of p53 inhibit p53-regulated gene expression. Science 256, 827-830.
Levine, A. J. 1997. p53, the cellular gatekeeper for growth and division. Cell 88, 323-31.
Levine, A. J., J. Momand, and C. A. Finlay. 1991. The p53 tumour suppressorgene. Nature 351, 453-6.
Lowe, S., S. Bodis, A. McClatchey, L. Remington, H. Ruley, D. Fisher, D. Housman, and T. Jacks. 1994. p53 status and the efficacy of cancer therapy in vivo. Science 266, 807-810.
Lowe, S. W., H. E. Ruley, T. Jacks, and D. E. Housman. 1993. p53-dependent apoptosis modulates the cytotoxicity of anticancer agents. Cell 74, 957-67.
Miyashita, T., and J. C. Reed. 1995. Tumor suppressor p53 is a direct transcriptional activator of the human bax gene. Cell 80, 293-9
O'Gorman, S., D. T. Fox, and G. M. Wahl. 1991. Recombinase-mediated gene activation and site-specific integration in mammalian cells. Science 251, 1351-1355.
Pear, W., G. Nolan, M. Scott, and D. Baltimore. 1993. Production of high-titer hel-per-free retroviruses by transient transfection. Proc Natl Acad Sci USA 90, 8392-8396.
Pear, W., M. Scott, and G. Nolan. Rapid production of high titer, helper-free re-troviruses using transient transfection. Methods in Gene Therapy in press and Internet Web page: hftp:Hwww.stanford.edu/qrour)/nolan/NL-phoenix.htmlRuss, A., C. Friedel, K. Ballas, K. U, D. Zahn, K. Strebhardt, and H. v. Melchner. 1996a. Identification of genes induced by factor deprivation in hematopoietic cells undergoing apoptosis using gene-trap mutagenesis and site-specific recombina-tion. Proc Natl Acad Sci U S A 93, 15279-15284.
Russ, A., C. Friedel, M. Grez, and H. v. Melchner. 1996b. Self-deleting retrovirus vectors for gene therapy. J Virot 70, 4927-4932.
Sauer, B., and N. Henderson. 1988. Site-specific recombination in mammalian cells by the Cre recombinase of bacteriophage PI. Proc. Natl. Acad. Sci. USA85, 5166-5170.
Sternberg, N., and D. Hamilton. 1981. Bacteriophage PI site-specific recombination. 1. Recombination between ioxp sites. J. Moi, Biol. 150, 467-486.
【図面の簡単な説明】
【図1】 腫瘍細胞を選択的に殺すためのベクターの概念および機能的原理を示す。P:プロモーター、MP:最小プロモーター、pA:ポリアデニル化配列、lx:配列特異的リコンビナーゼCreの標的配列loxP。
【図2】 腫瘍細胞を選択的に殺すための自己消滅型レトロウイルスベクターおよび機能的原理を示す。プロウイルスのインテグレーションの後、自殺遺伝子およびCreリコンビナーゼは2つのloxP部位の間に位置する。正常細胞にあっては、Creリコンビナーゼの発現が活性化され、組み込まれた配列の大部分は除去される。対照的に、癌細胞においては、転写因子が変異型として存在し、リコンビナーゼの転写を活性化することができない。この結果として、感染した癌細胞のみが自殺遺伝子を発現する。このようにして腫瘍細胞のみが、対応する薬物に感受性となる。U3RU5:プロモーターを有するレトロウイルス制御領域、MP:最小プロモーター、lx:すなわち配列特異的リコンビナーゼCreのloxP標的配列。
【図3】 ガンシクロビルによる腫瘍細胞を選択的に殺すための自己消滅型レトロウイルスベクターを示す。HSV−TK:単純ヘルペスウイルス2チミジンキナーゼ遺伝子、pg13:p53結合コンセンサス配列、CMV:サイトメガロウイルスプロモーター、MMTV:マウス乳腺腫瘍ウイルスプロモーター、lx:loxP、配列特異的リコンビナーゼCreの標的配列、SV40:シミアンウィルス40プロモーター、Puro:ピューロマイシン耐性遺伝子。
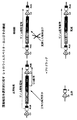
【図4】 自己消滅型レトロウイルスの正常細胞および腫瘍細胞に於ける相異なる挙動を示す。プロウイルスのインテグレーションによりLTRのU3領域が重複した後、構築体の大部分は2つのloxP部位の間に存在する。Cre酵素のp53依存性転写は、結果として正常細胞では選択的組換えをもたらす。腫瘍細胞においては、p53は変異型として存在し、そのため機能的には存在しない。したがってCreが介在する組換えが不可能であり、全プロウイルスが維持される。その結果、HSV−TKが発現し、腫瘍細胞をガンシクロビル感受性にする。正常細胞はHSV−TKを欠くため、ガンシクロビルに反応しない。HSV−TK:単純ヘルペスウイルス2チミジンキナーゼ遺伝子、pg13:p53結合コンセンサス配列、CMV:サイトメガロウイルスプロモーター、MMTV:マウス乳腺腫瘍ウイルスプロモーター、lx:配列特異的リコンビナーゼCreのloxP標的配列、SV40:シミアンウィルス40プロモーター、Puro:ピューロマイシン耐性遺伝子。
【図5】 CreレポータープラスミドpSVpax1を示す。Creが介在する組換えは、結果としてSV40プロモーターのLacZ遺伝子の転写をもたらす。SV:SV40プロモーター、lx:配列特異的リコンビナーゼCreの標的配列loxP、LacZ:βガラクトシダーゼ遺伝子、pA:ポリアデニル化配列。
【図6】 リポーター細胞株Saos2/pSVpax1へのp53依存性Cre発現プラスミドのトランスェクションを示す。A:ppg13ΔCMVCrepA単独(−p53)およびpSBC2−p53(+p53)とともにトランスェクション、B:ppg13ΔMMTVCrepA単独(−p53)およびpSBC2−p53(+p53)とともに同時トランスェクション。
【図7】 Creリコンビナーゼの検出のためのPCRを示す。ゲノムDNAをCre特異的プライマーで増幅した。SV40特異的プライマーをプロウイルスのインテグレーションの対照とした。
Claims (18)
- 以下の(a)〜(c)を含んで成る組換えベクター。
(a)リコンビナーゼをコードする配列と、それに機能するべく連結され、1つまたは複数の転写因子による活性化に依存する最小プロモーターMPと、転写因子結合部位と、選択肢としてポリアデニル化配列とを含む、少なくとも1つの第1転写カセット;
(b)自殺遺伝子と、それに機能するべく連結されたプロモーターPと、選択肢としてポリアデニル化配列とを含む、少なくとも1つの第2転写カセット;そして
(c)リコンビナーゼ標的配列を含む5’隣接配列および/または3’隣接配列。 - 前記転写因子結合部位が転写因子p53を結合することを特徴とする、請求項1に記載の組換えベクター。
- 5’および/または3’隣接配列が実質的にリコンビナーゼ標的配列からなること特徴とする、請求項1または2に記載の組換えベクター。
- ベクターがレトロウイルスベクターであることを特徴とする、請求項1〜4のいずれか1項に記載の組換えベクター。
- 5’および/または3’隣接配列が一部または全部のレトロウイルスLTR領域を含み、少なくとも1つのリコンビナーゼ標的配列が該5’および/または3’LTRのU3および/またはU5領域に埋め込まれていることを特徴とする、請求項4に記載の組換えベクター。
- リコンビナーゼがCreであることを特徴とする、請求項1〜5のいずれか1項に記載の組換えベクター。
- リコンビナーゼがFlpであることを特徴とする、請求項1〜6のいずれか1項に記載の組換えベクター。
- 前記リコンビナーゼ標的配列がloxPであることを特徴とする、請求項6に記載の組換えベクター。
- 前記リコンビナーゼ標的配列がFRTであることを特徴とする、請求項7に記載の組換えベクター。
- 最小プロモーターがΔCMVまたはΔMMTVであることを特徴とする、請求項1〜9のいずれか1項に記載の組換えベクター。
- 自殺遺伝子がチミジンキナーゼ遺伝子であることを特徴とする、請求項1〜10のいずれか1項に記載の組換えベクター。
- 自殺遺伝子がシトシンデアミナーゼをコードすることを特徴とする、請求項1〜10のいずれか1項に記載の組換えベクター。
- プロモーターPがMoMuLV−LTRプロモーターであることを特徴とする、請求項1〜12のいずれか1項に記載の組換えベクター。
- ベクターが少なくとも1つの選択マーカーカセットを含むことを特徴とする、請求項1〜13のいずれか1項に記載の組換えベクター。
- 前記選択マーカーカセットがSV40Puroであることを特徴とする、請求項14に記載の組換えベクター。
- 自殺遺伝子が(i)自殺タンパク質をコードする、または(ii)必須細胞性遺伝子に対し部分的または完全に相補的である、または(iii)細胞変性ウイルスをコードすることを特徴とする、請求項1〜15のいずれか1項に記載の組換えベクター。
- 請求項1〜14、または16のいずれか1項に記載の組換えベクターを含む薬学的組成物。
- 欠損転写因子を含む腫瘍細胞を請求項1〜14、または16のいずれか1項に記載の組換えベクターで感染させることにより得られる形質導入真核細胞。
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| DE19834430A DE19834430C2 (de) | 1998-07-30 | 1998-07-30 | Selbstdeletierende Vektoren für die Krebstherapie |
| DE19834430.9 | 1998-07-30 | ||
| PCT/EP1999/003607 WO2000006758A1 (de) | 1998-07-30 | 1999-05-25 | Selbstdeletierende vektoren für die krebstherapie |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2002522033A JP2002522033A (ja) | 2002-07-23 |
| JP3669927B2 true JP3669927B2 (ja) | 2005-07-13 |
Family
ID=7875892
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2000562540A Expired - Fee Related JP3669927B2 (ja) | 1998-07-30 | 1999-05-25 | 癌治療のための自己消滅型ベクター |
Country Status (9)
| Country | Link |
|---|---|
| US (1) | US6537805B1 (ja) |
| EP (1) | EP1019518B1 (ja) |
| JP (1) | JP3669927B2 (ja) |
| KR (1) | KR20010015624A (ja) |
| AT (1) | ATE315094T1 (ja) |
| AU (1) | AU731510B2 (ja) |
| CA (1) | CA2305655C (ja) |
| DE (2) | DE19834430C2 (ja) |
| WO (1) | WO2000006758A1 (ja) |
Families Citing this family (12)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| AU5642000A (en) * | 1999-06-30 | 2001-01-31 | University Of Utah Research Foundation | Self-induced deletion of dna |
| EP1134287A1 (en) * | 2000-03-08 | 2001-09-19 | Universite De Geneve | A system to control the expression of a given gene using another gene that encodes a polypeptide with recombinant activity |
| AU2001251138A1 (en) * | 2000-03-31 | 2001-10-15 | Mayo Foundation For Medical Education And Research | Compositions and methods for tissue specific gene regulation therapy |
| DE10023887A1 (de) * | 2000-05-17 | 2001-11-29 | Axel Haverich | Verfahren zur transienten Insertion genetischer Elemente |
| GB0014820D0 (en) * | 2000-06-16 | 2000-08-09 | Medical Res Council | Methods and materials relating to plasmid vectors |
| DE10038573A1 (de) * | 2000-08-03 | 2002-02-21 | Mpb Cologne Gmbh Molecular Pla | Verfahren zur Selektion auf Wirtszellen mit eliminierten DNA-Sequenzen |
| NL1017852C2 (nl) * | 2001-04-17 | 2002-10-29 | Multigen Holding S A | Recombinant nucleotidevolgorde welke codeert voor een gen. |
| US20070282333A1 (en) | 2006-06-01 | 2007-12-06 | Fortson Reginald D | Ultrasonic waveguide and blade |
| JP2016524590A (ja) * | 2013-03-14 | 2016-08-18 | エペイウス バイオテクノロジーズ コーポレイション | 遺伝子療法適用のためのチミジンキナーゼ診断アッセイ |
| US20170362580A1 (en) * | 2014-12-12 | 2017-12-21 | James Zhu | Methods and compositions for selectively eliminating cells of interest |
| CN110073000A (zh) * | 2016-07-26 | 2019-07-30 | 森迪生物科学公司 | 遗传擦除子 |
| WO2018053306A1 (en) * | 2016-09-15 | 2018-03-22 | University Of Miami | Double suicide gene vector systems for stem cells |
Family Cites Families (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US5571688A (en) * | 1993-05-06 | 1996-11-05 | Mekalanos; John J. | Method of detecting gene expression |
| DE19530412A1 (de) | 1995-08-18 | 1997-02-20 | Harald Von Prof Dr Melchner | Selbst deletierende retrovirale Vektoren für die Gentherapie |
| AU716781B2 (en) * | 1995-10-13 | 2000-03-09 | Purdue Research Foundation | Method for the production of hybrid plants |
-
1998
- 1998-07-30 DE DE19834430A patent/DE19834430C2/de not_active Expired - Fee Related
-
1999
- 1999-05-25 AU AU43682/99A patent/AU731510B2/en not_active Ceased
- 1999-05-25 US US09/509,654 patent/US6537805B1/en not_active Expired - Fee Related
- 1999-05-25 AT AT99926413T patent/ATE315094T1/de not_active IP Right Cessation
- 1999-05-25 WO PCT/EP1999/003607 patent/WO2000006758A1/de not_active Ceased
- 1999-05-25 EP EP99926413A patent/EP1019518B1/de not_active Expired - Lifetime
- 1999-05-25 KR KR1020007003212A patent/KR20010015624A/ko not_active Ceased
- 1999-05-25 JP JP2000562540A patent/JP3669927B2/ja not_active Expired - Fee Related
- 1999-05-25 DE DE59913022T patent/DE59913022D1/de not_active Expired - Fee Related
- 1999-05-25 CA CA002305655A patent/CA2305655C/en not_active Expired - Fee Related
Also Published As
| Publication number | Publication date |
|---|---|
| JP2002522033A (ja) | 2002-07-23 |
| CA2305655C (en) | 2007-07-17 |
| AU4368299A (en) | 2000-02-21 |
| WO2000006758A1 (de) | 2000-02-10 |
| EP1019518A1 (de) | 2000-07-19 |
| US6537805B1 (en) | 2003-03-25 |
| ATE315094T1 (de) | 2006-02-15 |
| DE19834430C2 (de) | 2000-05-31 |
| KR20010015624A (ko) | 2001-02-26 |
| DE19834430A1 (de) | 2000-02-03 |
| AU731510B2 (en) | 2001-03-29 |
| DE59913022D1 (de) | 2006-03-30 |
| CA2305655A1 (en) | 2000-02-10 |
| EP1019518B1 (de) | 2006-01-04 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| EP0776161B1 (en) | Use of a viral vector encoding a cytochrome p450 gene in combination with a chemotherapeutic agent for selectively destroying neoplastic cells | |
| US6485965B1 (en) | Replicating or semi-replicating viral constructs, preparation and uses for gene delivery | |
| JPH08507687A (ja) | 遺伝子治療用の改良されたベクター | |
| PT1076715E (pt) | Células empacotadoras lentivirais | |
| US6537805B1 (en) | Self-deleting vectors | |
| JP2004305227A (ja) | 条件致死遺伝子を利用する組成物及び方法 | |
| US5858744A (en) | Retroviral vector hybrids and the use thereof for gene transfer | |
| US7056730B2 (en) | Expression of heterologous genes from an IRES translational cassette in retroviral vectors | |
| US6893634B1 (en) | Encapsulated cells producing cytochrome P450 | |
| Howard et al. | Transduction of human pancreatic tumor cells with vesicular stomatitis virus G-pseudotyped retroviral vectors containing a herpes simplex virus thymidine kinase mutant gene enhances bystander effects and sensitivity to ganciclovir | |
| EP0880594B1 (en) | Retroviral vector and its use in gene therapy | |
| US6677155B1 (en) | Triple hybrid amplicon vector systems to generate retroviral packaging lines | |
| WO1998049334A1 (fr) | Nouveau site interne d'entree des ribosomes et vecteur le contenant | |
| JPH11507244A (ja) | Srv−3エンベロープ糖タンパク質配列で偽型化したレトロウイルスベクター | |
| CA2257916A1 (fr) | Generation de molecules replicatives in vivo | |
| EP0845041A1 (en) | Self-deleting vectors for gene therapy | |
| US6540995B1 (en) | Encapsulated cells producing cytochrome P450 | |
| EP1059356A1 (en) | Replicating or semi-replicating retroviral constructs, preparation and uses for gene delivery | |
| US6537541B1 (en) | Implantation of HSV-TK retrovirus producer cells to destroy glioma | |
| Andreú et al. | Self-deleting Suicide Vectors (SDSV) Selective Killing of p53-deficient Cancer Cells | |
| WO2000065077A1 (en) | Triple hybrid amplicon vector systems to generate retroviral packaging lines | |
| CA2228159A1 (en) | Self-deleting vectors for gene therapy | |
| FR2820146A1 (fr) | Procede d'obtention de cellules d'encapsidation fortement productrices de retrovirus par elimination, au sein de la culture, des cellules permissives a l'infection par le retro virus produit | |
| WO1996035455A1 (en) | Gene therapy through transduction of oral epithelial cells |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20041116 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20050209 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20050314 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20050412 |
|
| R150 | Certificate of patent or registration of utility model |
Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20090422 Year of fee payment: 4 |
|
| LAPS | Cancellation because of no payment of annual fees |