JP4132694B2 - 受容体認識部位が保存された生理活性物質の誘導体及びその使用方法 - Google Patents
受容体認識部位が保存された生理活性物質の誘導体及びその使用方法 Download PDFInfo
- Publication number
- JP4132694B2 JP4132694B2 JP2001066198A JP2001066198A JP4132694B2 JP 4132694 B2 JP4132694 B2 JP 4132694B2 JP 2001066198 A JP2001066198 A JP 2001066198A JP 2001066198 A JP2001066198 A JP 2001066198A JP 4132694 B2 JP4132694 B2 JP 4132694B2
- Authority
- JP
- Japan
- Prior art keywords
- receptor
- linker
- site
- amino acid
- peptide
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Fee Related
Links
- 0 O=C(CCCCC1SCC2N*=NC12)N1CCN(CN(C(CC2SCCS)=O)C2=O)CC1 Chemical compound O=C(CCCCC1SCC2N*=NC12)N1CCN(CN(C(CC2SCCS)=O)C2=O)CC1 0.000 description 1
Images



Landscapes
- Investigating Or Analysing Biological Materials (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Medicines Containing Antibodies Or Antigens For Use As Internal Diagnostic Agents (AREA)
- Peptides Or Proteins (AREA)
Description
【発明の属する技術分野】
本発明は、生理活性物質の受容体認識部位を保存したまま当該生理活性物質の生理活性を非活性化する方法、その非活性化誘導体、それに対する抗体、及びその利用方法に関する。また、本発明は、生理活性を保持したままの同生理活性物質の誘導体及びその利用方法に関する。
より詳細には、本発明は、受容体の内部の作用部位に結合して生理活性を発現する物質において、当該生理活性物質の受容体認識部位以外の部分にリンカーを結合し、当該リンカーの他端に当該受容体に侵入することができない物質又は当該受容体に侵入することができない物質と親和性を有する物質を結合させることからなる生理活性物質の受容体認識部位を保存したまま当該生理活性物質を非活性化する方法、その非活性化誘導体、それに対する抗体、及びその利用方法と、
当該生理活性物質の受容体認識部位以外の部分を化学修飾して、当該化学修飾部位にリンカーを結合し、当該リンカーの他端を担体に固定するか、又は当該リンカーの他端に担体に固定し得る(又は担体と親和性を有する)物質或いは担体に固定された物質と親和性を有する物質を結合させてなる、生理活性が保持された生理活性物質の誘導体、及びその利用方法に関する。
【0002】
【従来の技術】
蛇、サソリ、貝などの動物が毒素をもっていることがあり、これらの毒素は神経細胞の作用を抑制して、他の動物を動けなくしたり、殺したりすることがある。これらの毒素の多くは細胞の受容体(チャネルなどを含む)に作用することが知られている。
これらの毒素に対するワクチンなども作製されているが、これらの毒素そのものに対する抗体を作製することは困難な場合が多い。なぜならば、抗体を作製するためにこれらの毒素を動物に感作させると、多くの場合感作させられた動物が抗体を作る前に死亡することが多いからである。
例えば、イモ貝より単離されたμ−コノトキシンは、筋肉などの細胞のナトリウムイオンチャネルを選択的に阻害するペプチド毒であるが、このものの抗体を作製することも困難であった。
【0003】
また、従来は生理活性物質の生理活性を抑制するために、生理活性部位に着目して、この部位を化学修飾などをすることにより、その生理活性を調整することが行われてきた。例えば、前述した毒素の場合には加熱して変性させるなどして、生理活性部位を変性させることにより弱毒化することが行われてきた。
しかし、生理活性部位を化学的又は物理的に変えた場合には、当該生理活性物質の生理活性自体が変更されることから、それに対する抗体を製造することはできない。
【0004】
さらに、生理活性物質が作用する受容体の、作用部位の深さや、当該受容体の入口の大きさなどを計測しようとする場合には、受容体の立体構造を決定しなければならず、煩雑な操作が必要とされていた。
【発明が解決しようとする課題】
本発明は、このような従来の問題点を解決するために、生理活性物質の受容体認識部位を保存したまま当該生理活性物質の生理活性を非活性化する方法、及びその非活性化誘導体、並びに化学修飾後も生理活性が保持されたままの生理活性物質の誘導体を提供するものである。
また、本発明は受容体の入口の大きさや、作用部位の深さを測定するための新規な方法を提供するものでもあり、更には新しいナトリウムチャネルやカルシウムチャネルを単離する方法を提供するものでもある。
【0005】
【課題を解決するための手段】
本発明は、受容体の内部の作用部位に結合して生理活性を発現する物質において、当該生理活性物質の受容体認識部位以外の部分にリンカーを結合し、当該リンカーの他端に当該受容体に侵入することができない物質又は当該受容体に侵入することができない物質と親和性を有する物質を結合させることからなる生理活性物質の受容体認識部位を保存したまま当該生理活性物質を非活性化する方法、及びその非活性化誘導体、並びにそれに対する抗体及びその製造方法に関する。
また、本発明は、細胞を、リンカーの一端に受容体に侵入することができない物質と親和性を有する物質が結合している前記した生理活性物質の非活性化誘導体で処理して、当該生理活性物質の受容体認識部位を受容体に結合し得る状態とし、次いで当該細胞系を受容体に侵入することができない物質で処理して、当該受容体の活性を測定することからなる当該受容体と生理活性物質との親和性を測定する方法、細胞を、リンカーの一端に受容体に侵入することができない物質が結合している前記した生理活性物質の非活性化誘導体で処理して、当該受容体の活性を測定することからなる当該受容体の入口と当該生理活性物質の作用部位との距離を測定する方法、及び、細胞を、受容体の作用部位に達しない長さのリンカーの一端に受容体の入口の大きさに応じた物質が結合している前記した生理活性物質の非活性化誘導体で処理して、当該受容体の活性を測定することからなる当該受容体の入口の大きさを測定する方法などの受容体の特性を測定又は計測する方法に関する。
更に、本発明は、受容体の内部の作用部位に結合して生理活性を発現する物質において、当該生理活性物質の受容体認識部位以外の部分を化学修飾して、当該化学修飾部位にリンカーを結合し、当該リンカーの他端を担体に固定するか、又は当該リンカーの他端に担体に固定し得る(又は担体と親和性を有する)物質或いは担体に固定された物質と親和性を有する物質を結合させてなる、生理活性が保持された生理活性物質の誘導体に関する。
更にまた、本発明は、当該生理活性が保持された生理活性物質の誘導体を用いるナトリウムチャネル又はカルシウムチャネルの単離方法に関する。
【0006】
受容体としてイオンチャネルを例にして本発明の概要を説明する。
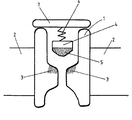
図1は、細胞膜2に貫通して設けられているイオンチャネル1に、生理活性物質4、この例では毒物として作用する生理活性物質4がイオンチャネル1の作用部位3に結合している状態を模式的に示すものである。生理活性物質3の受容体認識部位5が、当該生理活性物質に対するイオンチャネル1の作用部位3に結合することにより、イオンチャネル1が塞がれイオンが細胞内に入ってこれなくなり、その結果細胞に異常が生じることになる。
【0007】
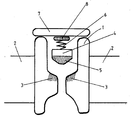
図2は本発明のひとつの態様を示したものである。生理活性物質4はリンカー6により、受容体に侵入することができない物質7に結合しており、リンカー6の長さが十分でないために生理活性物質4の受容体認識部位5と、イオンチャネル1の作用部位3とが結合することができず、その結果生理活性物質4によりイオンチャネル1を塞ぐことができず、イオンはイオンチャネル1を自由に通過することができる。その結果、生理活性物質4は受容体認識部位5をその活性な化学構造を保持しているにもかかわらず、イオンチャネル1に対する活性が非活性化されることになる。
【0008】
図3は本発明の他のひとつの態様を示したものである。生理活性物質4はリンカー6により、受容体に侵入することができない物質と親和性を有する物質8に結合しており、この物質8は受容体に侵入することができない物質7に親和力により結合している。そして、前記した図2の場合と同様に、リンカー6の長さが十分でないために生理活性物質4の受容体認識部位5と、イオンチャネル1の作用部位3とが結合することができず、その結果生理活性物質4によりイオンチャネル1を塞ぐことができず、イオンはイオンチャネル1を自由に通過することができる。その結果、生理活性物質4は受容体認識部位5をその活性な化学構造を保持しているにもかかわらず、イオンチャネル1に対する活性が非活性化されることになる。
なお、図2及び図3において、リンカーが充分に長い場合(例えば、後記化合物6の場合等)には当然のことながら、活性阻害はなく、本来の活性を示す。
【0009】
次に、本発明を生理活性物質としてイモ貝より単離されたμ−コノトキシンにより、より具体的に説明する。ペプチド毒であるμ−コノトキシンは、ナトリウムチャネルのサイト1に作用する毒物として、テトロドトキシンやサキシトキシンなどと同種の毒物であることが知られている。
μ−コノトキシンのアミノ酸配列とその立体構造の概要を図4に示す。図4は、μ−コノトキシンGIIIAを示し、このものは1位のアルギニンから22位アラニンまでの22個のアミノ酸からなるものである。3位のシステインと15位のシステイン、4位のシステインと20位のシステイン、及び10位のシステインと21位のシステインが、各々S−S結合により結合している。μ−コノトキシンGIIIAの活性中心は13位のアルギニン付近である。
【0010】
μ−コノトキシンGIIIAの各アミノ酸の生理活性に与える影響を各アミノ酸をアラニン又はリジンに代えることにより調べた結果を図5に示す。図5の縦軸摘出ラット横隔膜標本の電気刺激による収縮を50%阻害する濃度(IC50(log(M)))を示し、点線は天然のμ−コノトキシンGIIIAのIC50を示している。図5の横軸は1位から22位までのアミノ酸を示し、図5の黒塗りは該当部位のアミノ酸をアラニンに置換した場合のIC50を示し、灰色は該当部位のアミノ酸をリジンに置換した場合のIC50を示している。
図5によれば、例えば13位のアルギニンをアラニンやリジンに代えるとIC50が上昇し、即ち活性が無くなる、即ち13位のアルギニンはμ−コノトキシンGIIIAの生理活性に必須の部分を形成していると考えられる。
一方、5位のトレオニンや9位のリジンは、これをアラニンに代えてもIC50に変化がみられず、これはこの部位はμ−コノトキシンGIIIAの生理活性に影響を与えない部位であると考えられる。
【0011】
本発明者らは、13位の活性部位、即ち受容体認識部位の立体的にほぼ反対側に相当する5位のトレオニンに着目した。5位のトレオニンの部位は、立体的に受容体認識部位の背面に相当し、かつ生理活性に影響を与えない部分である。
本発明者らは、この5位のトレオニンの部位にリンカーを導入するために、官能基を有するアミノ酸で置換した。本実験においては、官能基を有するアミノ酸としてシステイン又はリジンを採用した。μ−コノトキシンGIIIAは8位、9位などにリジンを有しており、このリジンのアミノ基との化学反応性を明確にするために、官能基を有するアミノ酸としては、メルカプト基を有するシステインが好ましい。
【0012】
天然のμ−コノトキシンGIIIA(μGIIIA)、5位のトレオニンをS−メチルベンジルシステインで置換したμ−コノトキシンGIIIA(Cys(MeBzl)5)、及び5位をN−ビオチン化リジンで置換したμ−コノトキシンGIIIA(Lys(Biot)5)について、ラット骨格筋の収縮について試験をした。結果を図6に示す。図6は骨格筋収縮実験の結果を示す図面に代わる写真である。図6の縦軸は骨格筋の張力(mN(ミリニュートン))を示し、黒い部分が大きいことはナトリウムイオンチャネルが正常な状態であって、骨格筋が十分な張力を有していることを示している。図6の横軸は時間(分)である。
図6の上段は、天然のμ−コノトキシンGIIIAを0.3μM添加したときの張力の推移を示している。μ−コノトキシンGIIIAの添加により張力が急速に低下し、骨格筋に異常が生じていることを示している。張力が無くなった後、これを水洗(wash)(図6中の白抜きの矢印)すると、添加されたμ−コノトキシンGIIIAが洗い流され張力が回復してくることがわかる。このときの0.3μMの阻害率は99%であった。
【0013】
図6の中段は、5位をS−メチルベンジルシステインで置換したμ−コノトキシンGIIIA(Cys(MeBzl)5)を0.3μM添加し、さらに1μM添加したときをしめしている。張力が無くなることから、このものも天然のものと同様の生理活性を有していることがわかる。水洗(図6中の白抜きの矢印)により天然のものと同様に張力の回復が見られる。このときの0.3μMの阻害率は47%であった。
図6の下段は、5位をN−ビオチン化リジンで置換したμ−コノトキシンGIIIA(Lys(Biot)5)を0.3μM添加し、さらに1μM添加したときを示している。張力が無くなることから、このものも天然のものと同様の生理活性を有していることがわかる。水洗(図6中の白抜きの矢印)により天然のものと同様に張力の回復が見られる。このときの0.3μMの阻害率は62%であった。
【0014】
このように生理活性物質の受容体認識部位以外の部分を簡単な化学修飾してみても、当該生理活性物質の生理活性を非活性化することはできない。これはそもそも生理活性物質の受容体認識部位以外の部分はその生理活性に大きな寄与をしていないからである。
次に、本発明者らは、ビオチンに対して親和性を有しているアビジンを用いて、前記の5位をN−ビオチン化リジンで置換したμ−コノトキシンGIIIA(Lys(Biot)5)についての実験を行った。結果を図7に示す。図7は骨格筋収縮実験の結果を示す図面に代わる写真である。図7の縦軸及び横軸は図6のそれと同様である。
図7のa(図7最上段)は、Lys(Biot)5とアビジン(Av)を同時に添加した場合を示す。最初1μMを添加したが骨格筋収縮の異常は観測できなかった。次いでその濃度を3μM、10μMと上げていってもμ−コノトキシンGIIIAによる生理活性を観測することはできなかった。図6の下段に示される実験においてはLys(Biot)5は0.3μMで62%の阻害率を示し、1μMで天然のμ−コノトキシンGIIIAとほぼ同程度の阻害を示したが、これにアビジンを存在させることにより、10μMの濃度においても非活性化できることが分かった。
【0015】
次に先にアビジン(Av)を1μM添加しておき、次いでLys(Biot)5を1μM、3μMと添加して行った場合の結果を図7のb(図7上から2段目)に示す。この結果、先にアビジンを添加しておいても、Lys(Biot)5の活性が発現しないことがわかった。図7のbの右端、図7cの右端及び図のdは比較のために天然のμ−コノトキシンGIIIAを添加した場合の結果を示している。図7のbの右端の結果から、天然のμ−コノトキシンGIIIAの場合には、アビジンが存在していてもその生理活性に影響はほとんど無く、アビジンが存在しない場合とほぼ同程度の生理活性が発現することが分かる。
さらに、図7のc(図7の上から3段目)は、まずLys(Biot)5を1μM添加した場合の結果を示す。Lys(Biot)5の添加による骨格筋の収縮の阻害が観察される。次いで、その系にアビジン0.5μM、1μMを添加してゆくと、Lys(Biot)5による骨格筋収縮の阻害が徐々に無くなり、骨格筋収縮が正常化してくることがわかった。正常化したところに天然のμ−コノトキシンGIIIAを添加すると、骨格筋収縮の阻害がみられた(図7のcの右端)。
【0016】
以上の実験結果から、5位をN−ビオチン化リジンで置換したμ−コノトキシンGIIIA(Lys(Biot)5)は天然のものと同様な骨格筋収縮の阻害作用を有しているが、これにLys(Biot)5の添加と同時、添加前、又は添加後にビオチンに親和性を有するアビジンを添加すると、その阻害活性が非活性化されることがわかった。
そして、μ−コノトキシンGIIIAは、細胞のナトリウムチャネルのサイト1に作用することが知られており、これは当該チャネルの中程であることから、天然のものと同様な生理活性を有する5位をN−ビオチン化リジンで置換したμ−コノトキシンGIIIA(Lys(Biot)5)は化学修飾されていても、天然のものと同様にナトリウムチャネルの作用部位に結合して骨格筋収縮を阻害するが、これにアビジンを添加した場合には、Lys(Biot)5のビオチン部分がアビジンに優先的に結合し、もはやナトリウムチャネルに結合することができなくなったことを意味している。そして、アビジンは分子量約6万5千の巨大なタンパク質であり、ナトリウムチャネルのような小さなチャネルの中には侵入できない分子種であるから、丁度チャネルの外側から生理活性物質μ−コノトキシンGIIIAを化学修飾されたビオチンにより釣り上げたものと考えられる。
【0017】
さらに、5位のトレオニンをシステインで置換したμ−コノトキシンGIIIA(Cys−5)のメルカプト基の部分に、次式(I)、
【0018】
【化1】

で示されるビオチン化PEAC5を結合させた非活性化誘導体A(ビオチンPEAC5マレイミド)、及び、5位のトレオニンをシステインで置換したμ−コノトキシンGIIIA(Cys−5)のメルカプト基の部分に、次式(II)、
【0020】
【化2】
で示されるビオチン化PEを結合させた非活性化誘導体B(ビオチンPEマレイミド)を用いて同様の実験を行った。結果を図8に示す。図8は骨格筋収縮実験の結果を示す図面に代わる写真である。図8の縦軸及び横軸は図6のそれと同様である。
非活性化誘導体A(ビオチンPEAC5マレイミド)は、少し長めのリンカーを用いた例であり、非活性化誘導体B(ビオチンPEマレイミド)は短めのリンカーを用いた例である。
図8のa(図8の最上段)は、まず非活性化誘導体A(ビオチンPEAC5マレイミド)を1μM添加し、骨格筋の収縮が阻害されたときにアビジン(Av)を1μM添加した場合を示している。アビジンの添加により徐々に収縮の阻害が緩和されてきているが、その程度は比較的弱い。図8のb(図8の上から2段目)は、非活性化誘導体A(ビオチンPEAC5マレイミド)を1μMとアビジンとを同時に添加した場合を示している。アビジンの存在にもかかわらず、骨格筋の収縮阻害活性が少しずつでてきているようすがわかる。
図8のc(図8の上から3段目)は、まず非活性化誘導体B(ビオチンPEマレイミド)を1μM、次いで3μM添加し、骨格筋の収縮が阻害されたときにアビジン(Av)を1μM添加した場合を示している。アビジンの添加により比較的早く緩和されてきていることがわかる。
【0022】
非活性化誘導体A(ビオチンPEAC5マレイミド)に使用されているビオチン−リンカーでは、リンカー部の長さが比較的長くビオチンがチャネルの入口付近にまで達していることにより、アビジンを添加しても釣り上げられる距離が少なく、生理活性物質とチャネルとの解離が充分に行えない結果、アビジンの添加によっても急速な骨格筋収縮の回復が観測できなかったと考えられる。
一方、非活性化誘導体B(ビオチンPEマレイミド)の場合には、リンカー部の長さが比較的短く、アビジンの添加により大きく釣り上げられ、その結果図7に示した場合と同様に急速な骨格筋収縮の回復が観測できたと考えられる。
【0023】
これらの実験の結果は、先程の図3に示される状態であると考えられる。即ち、生理活性物質であるμ−コノトキシンGIIIA(図3の(4))のリンカー(6)を介してビオチン(8)が結合されている。そして、アビジン(7)が無い場合にはμ−コノトキシンGIIIA(4)の受容体認識部位(5)とナトリウムチャネル(1)の作用部位(3)が結合しており、ナトリウムイオンの細胞内への流入が阻害され、その結果骨格筋の収縮が阻害されることになる。本発明の化学修飾は受容体認識部位以外の部分においておこなわれることを特徴とするものであるから、本発明の化学修飾が行われてもその生理活性に大きな影響が無いのは当然のことである。このことは、図6の下段に示す実験や、図7のcの前半の実験の結果からも明らかである。
この系にアビジン(7)が存在してくると、アビジン(7)は分子が大きいのでチャネル(1)の内部には侵入することができなくて、図3に示されるようにチャネル(1)の外側に存在することになる。そして、ビオチン(8)とアビジン(7)の親和性によりビオチン部分を有するLys(Biot)5全体がアビジン(7)に釣り上げられたような格好になる。その結果、チャネル(1)と生理活性物質(4)との結合が解かれ、チャネル(1)は正常な作用をすることができるようになる。
【0024】
さらに、このことは、ビオチンとリンカーの長さが、チャネルの入口から作用部位までの距離よりも短いことを示している。なぜならば、仮にリンカーとビオチンの長さがチャネルの入口から作用部位の距離よりも長いのであるならば、ビオチンはチャネルの外側にでることができ、アビジンとの結合においては生理活性物質を動かすことなくチャネルの外側で自由にできるからである。その結果、アビジンとビオチンが結合しても生理活性に影響は生じないことになるからである。
このことは、リンカーの長さを変えてその生理活性を測定することにより、生理活性に変化が生じないリンカーの最少の長さが、受容体の入口と作用部位の距離であるということを示している。したがって、この方法により、受容体において生理活性物質が作用している部位と当該受容体の入口の距離を、本発明の非活性化誘導体のリンカーの長さにより測定することができる。
【0025】
また、Lys(Biot)5全体がアビジンに釣り上げられるということは、アビジンが受容体の中に侵入できない大きさであることを示している。なぜならば、仮にアビジンが受容体の中に侵入できる大きさであったならば、ビオチンと結合するためにアビジンのほうが受容体内に入り込み、生理活性物質と受容体との結合に変更が生じない結果、生理活性にも影響が生じないことになるからである。
このことは、本発明の非活性化誘導体における受容体に侵入することができない物質として、大きさの分かっている種々の物質を用いて生理活性物質の生理活性を測定することにより、当該生理活性に変更が生じる大きさの物質が、当該受容体の入口の大きさにほぼ匹敵するということになる。したがって、この方法により目的の受容体の入口の大きさを測定することができることになる。
【0026】
さらに、受容体の作用部位に生理活性物質が結合していたものが、ビオチンとアビジンとの親和力により解離させられるということから、受容体と生理活性物質との結合力よりもビオチンとアビジンの親和力のほうが大きいことがわかる。このことは、本発明の「受容体に侵入することができない物質と親和性を有する物質」と「受容体に侵入することができない物質」との組み合わせをその親和力が既知の種々のものに変更することにより、受容体と生理活性物質との結合力を測定することができることを示している。したがって、本発明のこの方法により受容体と生理活性物質との結合力を測定することが可能となる。
【0027】
【発明の実施の形態】
本発明は、受容体の内部に入ってその生理活性を発現する生理活性物質における、化学修飾に関するものであるが、当該化学修飾を生理活性部位ではなく、生理的に非活性の部分から行うことを特徴とするものである。特に、生理活性中心の立体的な背面に相当する部分の生理的に非活性な箇所を化学修飾することを特徴とし、かつその部分に釣り糸の如きリンカーを結合し、更に当該リンカーの他端に当該受容体に侵入することができない物質又は当該受容体に侵入することができない物質と親和性を有する物質を結合させることを特徴とするものである。
本発明は、このような化学修飾を行うことにより、生理活性中心をそのままの形で保存しながらも、生理的に非活性にすることができることを見出したものである。しかも、このような化学修飾により、生理活性物質の受容体に対する親和力と、立体的な障害や化学修飾部分の親和力との関係を測定することができる新規なツールを提供するものである。
【0028】
本発明の受容体としては、いわゆる受容体に限定されるものではなく、レセプター(受容体)、イオンチャネル、トランスポーター、ポンプなどの孔を形成するものであればよい。ナトリウムチャネル、カルシウムチャネル、アミノ酸トランスポーター、セレトニントランスポーターなどのイオンチャネルやトランスポーターなどは、細胞膜を貫通する孔を有しており本発明の受容体として好ましいものである。
本発明の生理活性物質としては、前記受容体の内部に入ってその生理活性を発現するもので、生理活性中心の背面に化学修飾ができる部位を有するものであればよい。分子量が余り小さいと化学修飾可能な部分が無いので好ましくない。受容体の内部にすっぽりと入ってゆけて、かつ生理的に非活性な部分を有するものであればよい。
本発明の生理活性物質は、前記受容体の中に入って作用して細胞に生理的な影響を与えるものであればよく、生理的作用を亢進するものであってもよいし、阻害するものであってもよい。生体内生理活性物質であってもよいし、医薬品のような物質であってもよいし、毒物となる物質であってもよい。また、タンパク質性の物質であっても、非タンパク質性の物質であってもよい。
【0029】
本発明のリンカーとしては、分子の一端に生理活性物質又は化学修飾された生理活性物質と化学結合し得る官能基を有し、他端に「受容体に侵入することができない物質」又は「受容体に侵入することができない物質と親和性を有する物質」と化学結合し得る官能基を有するものであって、両端の官能基の間に生理的に非活性の部分を有する化合物が好ましい。例えば、前記した一般式(I)や一般式(II)で示されるもの、或いは後記実施例5及び実施例6で得られた化合物に含まれるリンカー等が好ましいものとして挙げられる。両端の官能基の間の部分としては、非活性化誘導体の場合には、例えば炭素数1〜30、また、生理活性が保持された誘導体の場合には、例えば炭素数20〜50の鎖状基を有する基が挙げられる。なお、当該鎖状のなかの炭素原子の一部又は全部が酸素原子、窒素原子、イオウ原子などの異種原子によって置換されていてもよく、また、当該鎖状のなかに環を有していてもよい。このような環としては、炭素環であってもよいし、酸素原子、窒素原子、イオウ原子などの異種原子を有する複素環であってもよい。
【0030】
本発明の受容体に侵入することができない物質としては、受容体の入口の大きさよりも大きな分子で受容体の内部に侵入でないものであればよい。当該物質がリンカーに直接結合する場合には、前記リンカー分子に化学結合し得る官能基を有する分子である。また、当該物質がリンカーに直接結合しない場合には、リンカーに直接結合する物質と親和性がある物質である。
当該物質は必要に応じて、放射性元素や蛍光物質などで標識化することもできる。
【0031】
本発明の受容体に侵入することができない物質と親和性を有する物質としては、前記した「受容体に侵入することができない物質」と親和性を有し、リンカーに化学結合し得る官能基を有するものが好ましい。親和性としては特に制限はないが、化学親和力でも物理的な親和力であってもよいが、当該親和力を細胞系と同様な環境下で測定可能なものが好ましい。
【0032】
本発明の生理活性物質の非活性化誘導体は、生理活性部分を天然物と同じ形態で保持して、しかも生理的に非活性化されたものであることから、特に毒物の無毒化抗原として有用なものである。
本発明の抗体を製造する方法としては、通常の抗体の製造方法に従って製造することができる。生理活性物質が毒物であっても、本発明の非活性化誘導体は無毒化されていることから、そのまま感作動物に投与することができる。
本発明の生理活性物質の非活性化誘導体をラット、マウスなどの動物に投与して、感作し、抗体を含有する細胞を取り出し、これを常法にしたがって抗体を製造することができる。例えば、細胞融合法や抗体の遺伝子をクローニングしてキメラ抗体やヒト化抗体とするなどの方法を採用することができる。
【0033】
一方、本発明において、生理活性物質の受容体認識部位以外の部分を化学修飾して、当該化学修飾部位にリンカーを結合し、当該リンカーの他端を担体に固定する場合の担体としては、例えば、ポリスチレン、ポリプロピレン、ポリエチレン、ガラスビーズ、シリカゲル、多糖類(誘導体を含む)等が挙げられる。
また、リンカーの他端に結合させた物質と親和性を有する物質としては、例えばアビジン等が挙げられる。なお、アビジンはそれ自体を担体とすることも可能である。アビジンを担体とした場合、若しくはアビジンを担体に固定させた場合には、リンカーの他端に結合させる物質はビオチンとなる。
リンカーが充分に長い本発明化合物(例えば、後記化合物6等)は、例えばこれをアビジンカラムと使用することにより、新しいナトリウムチャネルやカルシウムチャネルを単離することが可能となる。また、リンカーが長く、活性を保持したままの本発明化合物(ビオチンアナローグ)をアビジンと複合させて分子量を大きくさせると、感度が上がり、例えば極低温電子顕微鏡等を用いて、ナトリルムチャネル上での結合部位を明らかにすることが出来る(毒そのものでは、分子が小さすぎて電子顕微鏡などで観察しにくい。)。
従って、リンカーが長く、活性を保持したままの本発明化合物は、生物学的にも利用価値の高いアナローグと言うことが出来る。
【0034】
【実施例】
次に実施例により本発明をより具体的に説明するが、本発明はこれらの具体例に限定されるものではない。
【0035】
実施例1 Cys(MeBzl)5−μ−コノトキシンの製造
脱離が可能な保護基を有するアミノ酸、Arg(Pmc)、Asp(OtBu)、Cys(Trt)、Gln(Trt)、Lys(Boc)、Ser(t-Bu)、Thr(tBu)、Hyp(tBu)ならびにMeBzlCysを有する保護ペプチドをFMOC法を用いた固相合成によって調製した。保護ペプチドは、樹脂をTFA−チオアニソール−H2O−フェノール−EDTによって氷冷下5分間、室温1.5時間攪拌することによって樹脂からはずし、エーテルで樹脂とともに沈殿させ、濾過後、2M酢酸で溶出した。樹脂を水で洗浄し、この洗液を先の酢酸溶液に加え、アンモニア水にてpHを7.8とした。この粗ペプチド(0.5mM,O.2M酢酸アンモニウム溶液)を1−2日間攪拌し、空気酸化した。凍結乾燥後、30%酢酸によるセファデックスG−50Fカラム、CM−セルロースCM−52によるイオン交換(酢酸アンモニウム0.01M〜0.7M)クロマト、ならびにODS−HPLC(0.1%TFA−アセトニトリル)によって精製し、収率4.7%で合成した。
結果のHPLCならびにMALDI−TOFマスを図9に示す。
【0036】
実施例2 Lys(Biot)5−μ−コノトキシン(化合物2)の製造
脱離が可能な保護基を有するアミノ酸、Arg(Pmc)、Asp(OtBu)、Cys(Trt)、Gln(Trt)、Lys(Boc)、Ser(t-Bu)、Thr(tBu)、Hyp(tBu)、ならびにLys(Biot)を使い、5位にLys(Biot)を有する保護ペプチドをFMOC法を用いた固相合成機によって調製した。保護ペプチドは、樹脂をTFA−チオアニソール−H2O−フェノール−EDTによって氷冷下5分間、室温1.5時間攪拌することによって樹脂からはずし、エーテルで樹脂とともに沈殿させ、濾過後、2M酢酸で溶出した。樹脂を水で洗浄し、この洗液を先の酢酸溶液に加え、アンモニア水にてpHを7.8とした。この粗ペプチド(0.5mM,0.2M酢酸アンモニウム溶液)を1−2日間攪拌し、空気酸化した。凍結乾燥後、30%酢酸によるセファデックスG−50Fカラム。CM−セルロースCM−52によるイオン交換(酢酸アンモニウム0.01M〜0.7M)クロマト、ならびにODS−HPLC(0.1%TFA−アセトニトリル)によって精製し、収率6.0%で合成した。
結果のHPLCならびにMALDI−TOFマスを図10に示す。
【0037】
実施例3 S−ビオチンPEAC5システイン−5−μ−コノトキシン(化合物3)の製造
(1)[Cys(MeBzl)5]−μ−コノトキシンをHFに溶解し0℃にて1時間反応した。HFを除去後、水に溶解してエーテルにて洗浄し、凍結乾燥した。生成物をODS−HPLC(0.1%TFA−9%アセトニトリル)にて精製し、[Cys5]−μ−コノトキシンを65%の収率で合成した。
結果のHPLCならびにMALDI−TOFマスを図11に示す。
(2)[Cys5]−μ−コノトキシンを0.02M酢酸アンモニウム溶液中、ビオチンPEAC5マレイミドと30秒間反応させ、セファデックスG25Fによるゲル濾過(0.02M酢酸アンモニウム)にて精製し、凍結乾燥した。
結果のMALDI−TOFマスを図12に示す。
【0038】
実施例4 S−ビオチンPE5システイン−5−μ−コノトキシン(化合物4)の製造
[Cys5]−μ−コノトキシンを0.02M酢酸アンモニウム溶液中ビオチンPEマレイミドと30秒間反応させ、セファデックスG25Fによるゲル濾過(0.02M酢酸アンモニウム)にて精製し、凍結乾燥した。
結果のMALDI−TOFマスを図13に示す。
【0039】
実施例5 PE−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物5)の製造
(1)ビオチンPEマレイミド(3.4mg)を0.02M酢酸アンモニウム溶液(pH4.0、1ml)に溶解し、エタンジチオール(20μl)を含有する0.02M酢酸アンモニウム溶液(pH4.0、500μl)中に滴下し、30分攪拌した。反応後、ジエチルエーテル(1ml×5)でエタンジチオールを除き、凍結乾燥した。これをRP−HPLCで精製した後、再度凍結乾燥して、下式
【0040】
【化3】
で示される化合物(PE−EDT)を得た。得られた化合物の質量スペクトルチャートを図14に示す。
(2)5mMのBM(PEO)4(20μl)を含有する0.02M酢酸アンモニウム(pH4.0)溶液に、[Cys5]−μ−コノトキシン(0.1μmol)を0.02MアンモニウムpH4.0(30μl)に溶解した溶液を加え、10分間撹拌した。これに6mMの上記(1)で得られた化合物 (50μl)を加え、30分間撹拌した。この溶液をそのままRP−HPLCで精製し、凍結乾燥して、下式
【0042】
【化4】
で示される化合物を得た。得られた化合物の質量スペクトルチャートを図15に示す。
【0044】
実施例6 PEAC−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物6)の製造
(1)ビオチンPEAC5マレイミド (4.2mg)を0.02M酢酸アンモニウム溶液(pH4.0、1ml)に溶解し、エタンジチオール(20μl)を含有する0.02M酢酸アンモニウム溶液(pH4.0、500μl)に滴下し、30分間撹拌した。反応後、ジエチルエーテル(lml×5)でエタンジチオールを除き、凍結乾燥した。これをRP−HPLCで精製した後、再度凍結乾燥して、下式
【0045】
【化5】
で示される化合物(PEAC−EDT)を得た。得られた化合物の質量スペクトルチャートを図16に示す。
(2)5mMのBM(PEO)4(20μl)を含有する0.02M酢酸アンモニウム溶液(pH4.0)に、[Cys5]−μ−コノトキシン(0.1μmol)を0.02M酢酸アンモニウム溶液(pH4.0、30μl)に溶かした溶液を加え、10分間撹拌した。
これに6mMの上記(1)で得た化合物(50μl)を加え、30分間撹拌した。
この溶液をそのままRP−HPLCで精製し、凍結乾燥して、下式
【0047】
【化6】
で示される化合物を得た。得られた化合物の質量スペクトルチャートを図17に示す。
【0049】
また、図18に、化合物5及び化合物6について行った骨格筋収縮実験の結果を示す図面に代わる写真を示す。図18の縦軸及び横軸は図6のそれと同様である。
図18の最上段は、まずPE−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物5)を1μM、次いで3μM添加し、骨格筋の収縮が阻害されたときにアビジン(Av)を3μM添加した場合を示している。アビジンの添加により収縮の阻害が緩和されている。図18の上から2段目は、まずPE−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物5)を1μM、次いで3μM添加し、次いでストレプトアビジン(StAv)を3μM添加した場合を示している。アビジンの場合と同様ストレプトアビジンの添加により収縮の阻害が緩和されていることが判る。図18の上から3段目は、まずPEAC−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物6)を1μM、次いで3μM添加し、骨格筋の収縮が阻害されたときにストレプトアビジン(StAv)を3μM添加した場合を示している。この場合も最上段及び2段目と同様、ストレプトアビジンの添加により収縮の阻害が緩和されている。図18の最下段は、PEAC−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物6)を1μM添加し、骨格筋の収縮が阻害されたときにアビジン(Av)を1μM添加した場合を示しているが、この場合にはアビジンを添加しても収縮の阻害が緩和されない、即ち、μ−コノトキシンの骨格筋収縮に対する阻害活性がそのまま保持されていることが判る。
【0050】
試験例1 ラット骨格筋の収縮試験
ラットの横隔膜を摘出後、適当な大きさに裁断してリンガー液中に懸垂する。この筋標本の電気刺激によって生じる張力を電気的に測定した。サンプルを水に溶解し、この標本に加えその際生じる張力の減少を測定した。また、リンガー液を代えることあるいはさらに薬物を添加することによって薬物の影響からの回復する過程を記録した。
【0051】
試験例2 骨格筋収縮に対する阻害活性(IC50)の測定
天然のμ−コノトキシンGIIIA、5位のトレオニンをシステインで置換したμ−コノトキシンGIIIA及びμ−コノトキシンGIIIAの各種ビオチンアナローグについて、電気刺激に対する骨格筋収縮における阻害活性の程度を測定した。結果を表1に示す。
【0052】
【表1】
【発明の効果】
本発明は、生理活性物質の生理的に非活性な部分、好ましくは生理活性部分の立体的に裏側の部分を化学修飾し、これにリンカー部及び立体的に大きな分子を結合させることにより、生理活性部分をそのまま保持した生理的に非活性な誘導体と、生理活性を保持したままの誘導体とを提供するものである。また、本発明は生理活性物質の新規な非活性化方法と、生理活性物質の非活性化誘導体に対する抗体を提供するものである。
本発明の非活性化誘導体は生理活性中心がそのまま保持されていることから、毒物であっても抗体の製造が容易となるばかりでなく、当該生理活性物質の受容体の構造解析をするための新規な方法をも提供するものである。
また、リンカーが長く、活性を保持したままの本発明化合物を用いることにより、新しいナトリウムチャネルやカルシウムチャネルの単離も可能である。
更に、リンカーが長く、活性を保持したままの本発明化合物を用いることにより、例えば極低温電子顕微鏡等を用いて、ナトリルムチャネル上での結合部位を明らかにすることが出来る
【図面の簡単な説明】
【図1】図1は、生理活性物質と受容体との関係を模式的に示したものである。
【図2】図2は、本発明の非活性化誘導体と受容体との関係を模式的に示したものである。
【図3】図3は、本発明の別の態様の非活性化誘導体と受容体との関係を模式的に示したものである。
【図4】図4は、μ−コノトキシンGIIIAのアミノ酸配列及びその立体構造を模式的に示したものである。
【図5】図5は、μ−コノトキシンGIIIAの各位のアミノ酸をアラニン又はリジンに置換した場合のIC50をグラフ化したものである。黒塗りはアラニンに置換した場合を、灰色はリジンに置換した場合を、NTは試験していない場合を示す。
【図6】図6は、μ−コノトキシンGIIIA(μGIIIA)(図6の上段)、5位のトレオニンをS−メチルベンジルシステインで置換したμ−コノトキシンGIIIA(Cys(MeBzl)5)(図6の中段)、及び5位をN−ビオチン化リジンで置換したμ−コノトキシンGIIIA(Lys(Biot)5)(図6の下段)について、ラット骨格筋の骨格筋収縮実験の結果を示す図面に代わる写真である。図6の縦軸は骨格筋の張力(mN(ミリニュートン))を示し、図6の横軸は時間(分)である。
【図7】図7は、Lys(Biot)5とアビジン(Av)を同時に添加した場合(図7最上段)、先にアビジン(Av)を添加し、次いでLys(Biot)5を添加した場合(図7上から2段目)、まずLys(Biot)5を添加し、次いで、その系にアビジンを添加した場合(図7の上から3段目)、μ−コノトキシンGIIIA(μGIIIA)のみの場合(図7の最下段)について、ラット骨格筋の骨格筋収縮実験の結果を示す図面に代わる写真である。図7の縦軸は骨格筋の張力(mN(ミリニュートン))を示し、図7の横軸は時間(分)である。
【図8】図8は、まず非活性化誘導体A(ビオチンPEAC5マレイミド)を添加し、次いでアビジン(Av)を添加した場合(図8の最上段)、非活性化誘導体A(ビオチンPEAC5マレイミド)とアビジンとを同時に添加した場合(図8の上から2段目)、及び非活性化誘導体B(ビオチンPEマレイミド)を添加し、次いでアビジン(Av)を添加した場合(図8の上から3段目)について、ラット骨格筋の骨格筋収縮実験の結果を示す図面に代わる写真である。図8の縦軸は骨格筋の張力(mN(ミリニュートン))を示し、図8の横軸は時間(分)である。
【図9】図9は、[Cys(MeBzl)5]−μ−コノトキシンのHPLC(左)とMALDI−TOFマス(右)のチャートを示す。
【図10】図10は、[Lys(Biot)5]−μ−コノトキシンのHPLC(左)とMALDI−TOFマス(右)のチャートを示す。
【図11】図11は、[Cys5]−μ−コノトキシンのHPLC(左)とMALDI−TOFマス(右)のチャートを示す。
【図12】図12は、ビオチンPEAC5マレイミド化[Cys5]−μ−コノトキシンのMALDI−TOFマスのチャートを示す。
【図13】図13は、ビオチンPEマレイミド[Cys5]−μ−コノトキシンのMALDI−TOFマスのチャートを示す。
【図14】図14は、PE−EDTの質量スペクトルチャートを示す。
【図15】図15は、PE−EDT−BM(PEO)4化[Cys5]−μ−コノトキシンの質量スペクトルチャートを示す。
【図16】図16は、PEAC−EDTの質量スペクトルチャートを示す。
【図17】図17は、PEAC−EDT−BM(PEO)4化[Cys5]−μ−コノトキシンの質量スペクトルチャートを示す。
【図18】図18は、まずPE−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物5)を添加し、次いでアビジン(Av)を添加した場合(図18の最上段)、まずPE−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物5)を添加し、次いでストレプトアビジン(StAv)を添加した場合(図18の上から2段目)、まずPEAC−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物6)を添加し、次いでストレプトアビジン(StAv)アビジン(Av)を添加した場合(図18の上から3段目)、及び、まずPEAC−EDT−BM(PEO)4化[Cys5]−μ−コノトキシン(化合物6)を添加し、次いでアビジン(Av)を添加した場合(図18の最下段)について、ラット骨格筋の骨格筋収縮実験の結果を示す図面に代わる写真である。図8の縦軸は骨格筋の張力(mN(ミリニュートン))を示し、図8の横軸は時間(分)である。
【符号の説明】
1 受容体
2 細胞膜
3 受容体の作用部位
4 生理活性物質
5 生理活性物質の受容体認識部位
6 リンカー
7 受容体に侵入することができない物質
8 受容体に侵入することができない物質と親和性を有する物質
Claims (19)
- 受容体の内部の作用部位に結合して毒性を発現するペプチド又はタンパク質からなる毒物において、当該ペプチド又はタンパク質の受容体認識部位以外のアミノ酸残基の官能基にリンカーを結合し、当該リンカーの他端にビオチンを介してアビジンを結合させることからなり、その際のリンカーの長さは、上記ペプチド又はタンパク質の受容体認識部位と受容体の作用部位とが結合できない長さである、ペプチド又はタンパク質の受容体認識部位を保存したまま無毒化する方法。
- ペプチド又はタンパク質からなる毒物の、受容体認識部位以外のアミノ酸残基を官能基を有するアミノ酸残基へ置換して、当該アミノ酸残基の官能基にリンカーを結合させてなる請求項1に記載の方法。
- ペプチド又はタンパク質からなる毒物の受容体認識部位以外のアミノ酸残基が、そのアミノ酸配列情報からみて立体的に受容体認識部位の背面部分である請求項1又は2に記載の方法。
- 受容体が、イオンチャネルである請求項1〜3のいずれかに記載の方法。
- イオンチャネルが、ナトリウムチャネル又はカルシウムチャネルである請求項4に記載の方法。
- ペプチド又はタンパク質からなる毒物がμ−コノトキシンである請求項3に記載の方法。
- 受容体の内部の作用部位に結合して毒性を発現するペプチド又はタンパク質からなる毒物において、当該ペプチド又はタンパク質の受容体認識部位以外のアミノ酸残基を官能基を有するアミノ酸残基へ置換して、当該アミノ酸残基の官能基にリンカーを結合し、当該リンカーの他端にビオチンを介してアビジンを結合させることからなり、その際のリンカーの長さは、上記ペプチド又はタンパク質の受容体認識部位と受容体の作用部位とが結合できない長さである、ペプチド又はタンパク質からなる毒物の無毒化物。
- ペプチド又はタンパク質からなる毒物の受容体認識部位以外のアミノ酸残基が、そのアミノ酸配列情報からみて立体的に受容体認識部位の背面部分である請求項7に記載の無毒化物。
- リンカーが、両端に官能基を有する異種原子を有してもよい炭素数1〜30の化合物からなる請求項7又は8に記載の無毒化物。
- 受容体が、イオンチャンネルである請求項7〜9のいずれかに記載の無毒化物。
- イオンチャネルが、ナトリウムチャネル又はカルシウムチャネルである請求項10に記載の無毒化物。
- ペプチド又はタンパク質からなる毒物がμ−コノトキシンである請求項8に記載の無毒化物。
- μ−コノトキシンの受容体認識部位以外のアミノ酸残基を官能基を有するアミノ酸残基への置換が、5位のトレオニンをシステインへの置換である請求項12に記載の無毒化物。
- 請求項7〜13のいずれかに記載の無毒化物からなる生理活性物質の受容体認識部位が保存された無毒化抗原。
- 請求項14に記載の無毒化抗原を、ヒトを除く動物に感作させて免疫させ、当該抗原に対する抗体を製造する方法。
- 請求項14又は15に記載の無毒化抗原に対する抗体。
- 抗体がモノクローナル抗体又はポリクローナル抗体である請求項16に記載の抗体。
- 受容体の内部の作用部位に結合して毒性を発現するペプチド又はタンパク質からなる毒物において、その受容体認識部位以外のアミノ酸残基の官能基に、当該受容体認識部位と受容体の作用部位とが結合できない長さのリンカーを結合し、当該リンカーの他端にはビオチンを結合させたペプチド又はタンパク質からなる毒物を、受容体に作用させて当該ペプチド又はタンパク質からなる毒物の受容体認識部位を受容体の作用部位 にあらかじめ結合させ、次いでアビジンで処理して、当該受容体の活性の変化量を測定することからなる当該受容体と当該ペプチド又はタンパク質からなる毒物との親和性を測定する方法。
- リンカーの長さを変えて測定する請求項18に記載の方法。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2001066198A JP4132694B2 (ja) | 2000-03-10 | 2001-03-09 | 受容体認識部位が保存された生理活性物質の誘導体及びその使用方法 |
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2000067622 | 2000-03-10 | ||
| JP2000-67622 | 2000-03-10 | ||
| JP2001066198A JP4132694B2 (ja) | 2000-03-10 | 2001-03-09 | 受容体認識部位が保存された生理活性物質の誘導体及びその使用方法 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2001322999A JP2001322999A (ja) | 2001-11-20 |
| JP4132694B2 true JP4132694B2 (ja) | 2008-08-13 |
Family
ID=26587247
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2001066198A Expired - Fee Related JP4132694B2 (ja) | 2000-03-10 | 2001-03-09 | 受容体認識部位が保存された生理活性物質の誘導体及びその使用方法 |
Country Status (1)
| Country | Link |
|---|---|
| JP (1) | JP4132694B2 (ja) |
Families Citing this family (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| MXPA05009579A (es) * | 2003-03-13 | 2005-11-17 | Glaxosmithkline Biolog Sa | Proceso de purificacion para citolisina bacteriana. |
-
2001
- 2001-03-09 JP JP2001066198A patent/JP4132694B2/ja not_active Expired - Fee Related
Also Published As
| Publication number | Publication date |
|---|---|
| JP2001322999A (ja) | 2001-11-20 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| DE69934228T2 (de) | Domäne 1 beta2-gpi polypetiden und deren diagnostische und therepeutische verwendungen | |
| CN112041337B (zh) | 修饰抗体、及放射性金属标记抗体 | |
| JPH10509415A (ja) | コノトキシン(conotoxin)ペプチド | |
| SA00210192B1 (ar) | مركبات ترابطية لمستقبل ميلانوكورتين Melanocortin | |
| JPH11508275A (ja) | 代謝に対する安定性および細胞膜透過性が改善されたペプチドおよびペプチド核酸の環状プロドラッグ | |
| JPS62500383A (ja) | シクロスポリン類に対するモノクロ−ナル抗体 | |
| EP1007561A2 (en) | Novel conjugates of opioids and endogenous carriers | |
| CN105131084B (zh) | 基于内吗啡肽2或Biphalin的棕榈酰化修饰的阿片肽类似物及其合成和应用 | |
| JPH10511954A (ja) | 抗炎症cd14ペプチド | |
| DE69423753T2 (de) | Polyoximverbindungen und deren herstellung | |
| JP4657721B2 (ja) | 新規な誘導システムの合成及び特徴付け、並びに標的細胞への治療対象分子のベクター化 | |
| WO1994025071A1 (en) | Polyoxime compounds and their preparation | |
| JP2875226B2 (ja) | 原発性胆汁肝硬変自己抗原 | |
| EP4314012A1 (en) | Immunomodulators | |
| CN109311910B (zh) | 他克莫司偶联物、其组合物、及其用途 | |
| JP2001322999A (ja) | 受容体認識部位が保存された生理活性物質の誘導体及びその使用方法 | |
| JP4568842B2 (ja) | 熱帯熱マラリア原虫のエノラーゼ蛋白質の部分ペプチドの製造方法 | |
| CN119708150B (zh) | 一种多肽类化合物、药学上可接受的盐、药物组合物及其应用 | |
| JPH0570484A (ja) | ペプチドおよびその塩 | |
| CN113164613B (zh) | 二聚的肽-磷脂缀合物的优化方法 | |
| RU2356576C1 (ru) | СИНТЕТИЧЕСКИЙ АНТИГЕН, ОБЛАДАЮЩИЙ СПОСОБНОСТЬЮ СВЯЗЫВАТЬ АУТОАНТИТЕЛА К β1-АДРЕНОРЕЦЕПТОРУ | |
| Sato et al. | Late‐Stage Intermolecular O‐Peptidylation Protocol Enabled by Sequential Acyl Transfer on Thiol‐Incorporated Threonine Followed by Desulfurization | |
| KR101966301B1 (ko) | 높은 항체결합용량과 온화한 용출 조건을 가진 항체정제용 흡착 리간드 및 그 용도 | |
| CN117683088A (zh) | 一种具有血浆稳定性的多肽及其制备方法 | |
| JPH0578391A (ja) | ペプチドおよびその塩 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A711 | Notification of change in applicant |
Free format text: JAPANESE INTERMEDIATE CODE: A712 Effective date: 20031031 |
|
| RD03 | Notification of appointment of power of attorney |
Free format text: JAPANESE INTERMEDIATE CODE: A7423 Effective date: 20040129 |
|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20041116 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20070918 |
|
| A521 | Written amendment |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20071119 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20080513 |
|
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20080602 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20110606 Year of fee payment: 3 |
|
| R150 | Certificate of patent or registration of utility model |
Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| LAPS | Cancellation because of no payment of annual fees |