JP4196232B2 - ポリペプチドの精製方法およびキット試薬 - Google Patents
ポリペプチドの精製方法およびキット試薬 Download PDFInfo
- Publication number
- JP4196232B2 JP4196232B2 JP26161998A JP26161998A JP4196232B2 JP 4196232 B2 JP4196232 B2 JP 4196232B2 JP 26161998 A JP26161998 A JP 26161998A JP 26161998 A JP26161998 A JP 26161998A JP 4196232 B2 JP4196232 B2 JP 4196232B2
- Authority
- JP
- Japan
- Prior art keywords
- polypeptide
- purification method
- purification
- fusion protein
- affinity
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Fee Related
Links
Images


Landscapes
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Peptides Or Proteins (AREA)
Description
【発明の属する技術分野】
本発明のポリペプチドの精製方法は、目的ポリペプチドを産生している細胞の破砕液にそのまま特定のリガンドが固定化された磁性担体を添加して該融合蛋白質を吸着させること、あるいは細胞を破砕する工程と目的蛋白質を磁性担体へ吸着させる工程を同時に行う該ポリペプチドの精製方法に関する。より具体的な態様としては、該目的ポリペプチドは、例えば遺伝子組換え技術により特定のリガンドと親和性を持つポリペプチドと生物学的に活性なポリペプチドとの融合蛋白質の形で産生され、該融合蛋白質の宿主細胞の破砕液をそのまま該融合蛋白質の該磁性担体との吸着へ供する精製方法、および細胞破砕と磁性担体への吸着を同時に行う該融合蛋白質の精製方法に関する。
【0002】
【従来の技術】
今日では、生物学の資料中の特定蛋白質を他の成分から分離するための多種多様な方法、物質、及びアプローチが存在する。一般的なアプローチの一例としては、担体に対する蛋白質の非特異的親和が挙げられる。例えば、蛋白質は分子の電荷に基づき、イオン交換クロマトグラフィーによって分離することができる。すなわち、蛋白質混合物が反対の電荷のクロマトグラフィーマトリックスに添加され、可逆的な静電気的相互作用により様々な蛋白質がマトリックスに結合する。該マトリックスに結合した蛋白質はイオン強度を高めることにより、もしくは溶出緩衝液のpHを変化させることによって、結合の弱いものから強いものの順に溶出される。
【0003】
別の一般的なアプローチとしては、分離手段として蛋白質の物理的特性を利用するものが挙げられる。例えば、ゲル濾過を用いて蛋白質の大きさに基づき蛋白質を分離することができる。この方法の場合、所定の大きさの孔を有するクロマトグラフィーのマトリックスを詰めたゲル濾過カラムに蛋白質混合物を添加する。その後、蛋白質は、通常緩衝液を用いて溶出され、個々のクロマトグラフィーフラクションとして収集されて分析される。
【0004】
第3の一般的なアプローチとしては、精製試薬に対する蛋白質の特異的親和性を利用するものがある。例えば、その蛋白質に対して特異的な抗体を用いて蛋白質を精製することができる。あるいは、逆に抗体をそれに特異的な抗原によって精製してもよい。通常、抗体もしくは抗原はカラム基材に結合され、その特定の抗原もしくは抗体を含んだ溶液がそのカラムに添加されて、免疫複合体を形成することができる。続いて、結合された免疫複合体の要素は、例えば非常にイオン強度が高い又はpHの高いもしくは低い緩衝液にさらすことにより、この抗原抗体複合体を不安定化させて溶出される。
【0005】
上記のように、アフィニティークロマトグラフィーは、精製したい蛋白質と固相に固定化されたリガンドとの間の特異的な相互作用を利用する、非常に効果的な蛋白質の精製方法である。通常、固相リガンドはいくつかの固有の科学的特性を有し、それにより分離対象の蛋白質を選択的に吸着する。他の混入蛋白質(contaminant protein )は、固相リガンドに結合しないか、もしくは適切な溶液で固相リガンドを洗浄することで除去される。
【0006】
遺伝子技術による混成遺伝子の調製の可能性は、組み換え蛋白質の製造に当たり新たな道を開いた。所望の蛋白質をコードする遺伝子配列とリガンドに対して高い親和性を有する蛋白質フラグメント(親和性ペプチド)をコードする遺伝子配列とを結合することにより、親和性ペプチドを使用する一工程で所望の組み換え蛋白質を融合蛋白質の形態において精製することが可能である。部位を制限した変異により、親和性ペプチドと所望の組み換え蛋白質との結合点に特定の化学的または酵素的な開裂部位を導入することも可能であり、その結果融合蛋白質を適当な親和性樹脂により精製した後に、所望の組み換え蛋白質を化学的または酵素的開裂により回収することができる。
【0007】
例えば、特許第2686090号公報には、遺伝子組み換え蛋白質として目的蛋白質のN末端あるいはC末端に6つのヒスチジン残基(以下、6×His と表す)を連結して、これに特異的なNiリガンドによりアフィニティー精製する方法が記されている。しかしながら、この方法では、親和性ペプチドとリガンドとの特異性が低く、高純度に精製できないことがある。
【0008】
また、クロストリジウム・ステルコラリウム(Clostridium stercorarium)から得られるキシラナーゼAのセルロース結合性領域(以下、CBDと示す)を使用して、目的蛋白質をこのCBDの融合蛋白質として産生させ、アフィニティー精製する方法が、J.Ferment. Bioeng.第81巻, 第553〜556頁(1996年)に報告されている。しかしながら、この方法は、CBDが大きく目的蛋白質の特性に影響を及ぼすことがある。
【0009】
上記以外にも斯かる精製方法は、例えば、Science 第198巻,第1056〜1063頁(1977年)(Itakuraらによる)、Proc.Natl.Acad.Sci. U.S.A.第80巻,第6848〜6852頁(1983年)(Germinoらによる)、Nucleic Acids Res.第13巻,第1151〜1162頁(1985年)(Nilsson らによる)、ならびにGene 第32巻,第321〜327頁(1984年)(Smith らによる)により報告されている。しかしながら、これらの方法においても、CBDと同様で、親和性ペプチド領域が大きく目的蛋白質の特性に影響を及ぼすことがある。
【0010】
【発明が解決しようとする課題】
以上のように、融合蛋白質を利用したアフィニティークロマトグラフィーは非常に優れた精製方法であるが、主として親水性である可溶性蛋白質の精製に用いられ、比較的疎水性が強い蛋白質では収率が低くなることがある。そこで、疎水性の強い融合蛋白質においても高い収率が得られるような精製方法が切望されている。
【0011】
【課題を解決するための手段】
本発明者らは、上記事情に鑑み鋭意検討した結果、細胞破砕懸濁液にそのまま磁性担体を添加して目的ポリペプチドを吸着させることにより、比較的疎水性の強い蛋白質においても、該ポリペプチドが細胞破砕片と非特異的に吸着してロスとなることもなく固定化リガンドとの高い親和力で目的融合蛋白質を吸着することができることを見出し、本発明を完成させるに至った。
【0012】
すなわち、本発明は以下のような構成からなる。
(1)目的とするポリペプチドを産生する細胞から該ポリペプチドを精製する方法において、該細胞を破砕した溶液から破砕片を取り除くことなくそのまま該ポリペプチドとの親和性を有するリガンドが結合された磁性担体に該ポリペプチドを吸着させた後、該ポリペプチドを回収することを特徴とするポリペプチドの精製方法。
(2)細胞を破砕する工程とポリペプチドとの親和性を有するリガンドが結合された磁性担体にポリペプチドを吸着させる工程とを同時に行う(1)の精製方法。
(3)ポリペプチドが融合蛋白質である(1)または(2)の精製方法。
(4)ポリペプチドが、リガンドとの親和性を有するポリペプチド領域が該ポリペプチドのアミノ末端アミノ酸もしくはカルボキシ末端アミノ酸に直接的または間接的に結合してなる融合蛋白質である(1)〜(3)のいずれかの精製方法。
(5)リガンドがニッケルイオンである(1)〜(4)のいずれかの精製方法。
(6)磁性担体が磁性化アガロース担体もしくは磁性化セルロース担体である(1)〜(5)のいずれかの精製方法。
(7)ポリペプチドが、セルロースとの親和性を有するポリペプチド領域が該ポリペプチドのアミノ末端アミノ酸もしくはカルボキシ末端アミノ酸に直接的または間接的に結合してなる融合蛋白質である(1)〜(3)のいずれかの精製方法。
(8)磁性化セルロース担体もしくはセルロースを結合せしめた磁性担体を用いる(7)の精製方法。
(9)ポリペプチドを産生する細胞が微生物である(1)〜(8)のいずれかの精製方法。
(10)ポリペプチドを産生する細胞がエシェリヒア・コリ(Escherichia coli)である(1)〜(8)のいずれかの精製方法。
(11)ポリペプチドを産生する細胞を超音波により破砕する(1)〜(10)のいずれかの精製方法。
(12)ポリペプチドを産生する細胞を酵素により破砕する(1)〜(10)のいずれかの精製方法。
(13)酵素がリゾチームもしくはβ−1,3−グルカンラミナリペンタオヒドロラーゼである(12)の精製方法。
(14)(1)〜(13)のいずれかの方法で精製して得られたポリペプチドを選択的開裂により除去することを特徴とするポリペプチドの精製方法。
(15)(1)〜(13)のいずれかの方法で精製して得られたポリペプチドの選択的開裂にプロテアーゼを用いる(12)の精製方法。
(16)プロテアーゼがトロンビン、Factor Xa 、エンテロキナーゼよりなる群から選ばれた少なくとも1種である(14)または(15)の精製方法。
(17)目的とするポリペプチドに結合するリガンドを保有した磁性担体、細胞破砕・吸着液、不要物の除去に用いられる洗浄液、該目的とするポリペプチドを担体から分離するために用いられる溶出液から構成されることを特徴とする(1)〜(16)のいずれかの精製方法に使用されるキット試薬。
(18)細胞破砕・吸着液および洗浄液のうちの少なくとも一方のpHが6〜8である(17)のキット試薬。
(19)細胞破砕・吸着液および洗浄液が同一の組成である請求項(17)または(18)のキット試薬。
(20)溶出液中に目的とするポリペプチドの磁性担体への特異吸着を拮抗阻害する物質を添加されている(17)〜(19)のいずれかのキット試薬。
(21)目的とするポリペプチドの磁性担体への特異吸着を拮抗阻害する物質がイミダゾールである(20)のキット試薬。
(22)目的とするポリペプチドの磁性担体への特異吸着を拮抗阻害する物質がセルビオースである(20)のキット試薬。
(23)細胞破砕・吸着液、洗浄液および溶出液中にアルカリ金属塩が含有される(17)〜(22)のいずれかのキット試薬。
(24)アルカリ金属塩がNaClもしくはKClである(23)のキット試薬。
【0013】
【発明の実施の形態】
本発明におけるポリペプチドの精製方法は、該ポリペプチドを産生する細胞を破砕した溶液から破砕片を取り除くことなくそのまま該ポリペプチドとの親和性を有するリガンドが結合された磁性担体に該ポリペプチドを吸着させた後、該ポリペプチドを回収することを特徴とする。この際、細胞を破砕する工程とポリペプチドとの親和性を有するリガンドが結合された磁性担体にポリペプチドを吸着させる工程とを同時に行うことが破砕から吸着への時間的なズレをなくす点から好ましい。また、破砕と吸着を同時に行うと、精製に要する操作時間を短縮することができる。
【0014】
通常、非磁性担体を用いてバッチ式で例えば融合蛋白質を精製する場合、担体は遠心分離操作により固液分離を行う。この分離方法は重力を利用したものであり、吸着の前に必ず細胞破砕片を除去する必要がある。もし、細胞破砕液をそのまま使用した場合は、二度と非磁性担体と細胞破砕片を分離することができなくなる。
【0015】
しかしながら、磁性担体を使用した場合、磁性担体のみ磁力により分離することができる。また、細胞破砕と担体への吸着を同時に行なうことも可能となる。斯かる精製方法は従来の非磁性担体を使用した方法と比べて破砕細胞片を遠心分離して除去する工程が必要なく、精製操作時間も短縮できる。
【0016】
本発明の精製方法は、上記ポリペプチドが融合蛋白質である場合に特に有用であり、該融合蛋白質は、リガンドとの親和性を有するポリペプチド領域(以下、親和性ペプチドという)が該ポリペプチドのアミノ末端アミノ酸もしくはカルボキシ末端アミノ酸に直接的または間接的に結合してなる融合蛋白質が好ましい。該融合蛋白質を得る方法は特に限定されないが、遺伝子組換え技術により微生物により生産するのが好ましい。
【0017】
上記融合蛋白質は、ポリペプチドに直接的または間接的に結合され得る。単一の親和性ペプチドを用いる場合には、同親和性ペプチドは該ポリペプチドのアミノ末端アミノ酸またはカルボキシ末端アミノ酸のいずれかに結合され得る。2個の親和性ペプチドを用いる場合には、それらの1個はポリペプチドのアミノ末端アミノ酸に結合され、他方はポリペプチドのカルボキシ末端アミノ酸に結合される。
【0018】
間接的結合の場合には、該親和性ペプチドは適当な選択的開裂部位を含み、それを介して、それらは所望のポリペプチドに結合される。該選択的開裂部位としては、好ましくはアミノ酸配列-(Asp)n -Lys- (nは2、3または4を示す)または-Ile-Glu-Gly-Arg- が考えられる。これはそれぞれプロテアーゼであるエンテロキナーゼおよび凝集Factor Xa により特異的に認識され得る。このような親和性ペプチドは、次にそれ自体公知の方法により酵素的に開裂することができる。
【0019】
直接的結合の場合には、該親和性ペプチドは、所望のポリペプチドに結合して残る。すなわち、該親和性ペプチドは化学的または酵素的に開裂することができない。したがって、この形態の結合は、所望のポリペプチドの活性が親和性ペプチドの存在により不利な影響を受けない場合に有利なものである。
【0020】
上記リガンドとしてはニッケルイオン、セルロース、グルタチオン等が、それらの該親和性ペプチドが低分子量であり、特異性が高い点から好ましい。また、磁性担体としては、磁性化アガアロース、磁性化セルロース等が価格、強度、粒径の点から好ましい。
【0021】
また、本発明における精製方法の別の態様として、セルロースとの親和性を有するポリペプチド領域(CBD)が該ポリペプチドのアミノ末端アミノ酸もしくはカルボキシ末端アミノ酸に直接的または間接的に結合してなる融合蛋白質を用いる精製方法が挙げられる。この場合、磁性担体として磁性化セルロース担体を単独で用いてもよいし、あるいは、磁性化アガロース担体等の磁性担体にセルロースをリガンドとして結合せしめたものを用いてもよい。
【0022】
上記ポリペプチドを産生する細胞は微生物であることが好ましい。該微生物としては、細菌、酵母等が挙げられるが、なかでもエシェリヒア・コリ(Escherichia coli)が好ましい。
【0023】
上記ポリペプチドを産生する細胞の破砕は、超音波もしくは酵素を用いて行うのが好ましい。酵素を用いる場合は、リゾチームもしくはザイモリエース(麒麟麦酒製)等のβ−1,3−グルカンラミナリペンタオヒドロラーゼなどの溶菌酵素が特に好ましい。
【0024】
上記の方法で精製して得られたポリペプチドは選択的開裂により除去されることが好ましい。その際にはプロテアーゼを用いるのが好ましく、なかでも、トロンビン、Factor Xa 、エンテロキナーゼ等が特に好ましい。
【0025】
上述したような精製方法に際して用いられる本発明におけるキット試薬は、目的とするポリペプチドに結合するリガンドを保有した磁性担体、細胞破砕・吸着液、不要物の除去に用いられる洗浄液、該目的とするポリペプチドを担体から分離するために用いられる溶出液から構成される。該溶出液は、該磁性担体の非特異吸着を回避するために該細胞破砕・吸着液または該洗浄液に添加される溶液の全てもしくは一部によって構成されることが好ましい。
【0026】
上記細胞破砕・吸着液および洗浄液のうちの少なくとも一方のpHが6〜8であることが好ましく、pH7〜8の範囲がより好ましい。また、細胞破砕・吸着液および洗浄液は同一の組成であることが担体へ吸着した該ポリペプチドの脱離を防ぐ点から、さらに好ましい。
【0027】
上記溶出液中には、目的とするポリペプチドの磁性担体への特異吸着を拮抗阻害する物質を添加して調製されることが好ましい。上記の目的とするポリペプチドの磁性担体への特異吸着を拮抗阻害する物質がイミダゾール、セルビオース、グルタチオン等が好ましい。
【0028】
さらに、上記の非特異吸着を回避するために、細胞破砕・吸着液、洗浄液および溶出液中にアルカリ金属塩が添加されることが好ましい。アルカリ金属塩としては、なかでも安全性、価格の点から、NaCl、KCl等が特に好ましい。
【0029】
【実施例】
以下、本発明の実施例を例示することによって、本発明の効果をより一層明確なものとする。
【0030】
実施例1 6×His /α−グルコシダーゼ融合蛋白質の磁性化Ni−アガロース担体による精製
まず、pUC119にバチルス・ステアロサーモフィルス(Bacillus stearothermophilus )ATCC12016 由来のα−グルコシダーゼ遺伝子を連結したプラスミドpBST(Appl Microbiol Biotechnol 第44巻,第629〜634頁,1996年)を鋳型に、α−グルコシダーゼ遺伝子の5’末端部に相補的な21個のヌクレオチド配列とその5’末端にEcoRI 認識配列、開始コドン(ATG)、6個のヒスチジンコード配列の順につなげたプライマー(5'-CCG GAA TTC ATG CAT CAC CAT CAC CAT CAC TTG AAA AAA ACA TGG TGG AAA-3’)およびα−グルコシダーゼ遺伝子の3'末端側に位置するpUC119に由来するプライマー(5'-CGC CAG GGT TTT CCC AGT CAC GAC-3’)にて、KOD DNAポリメラーゼ(東洋紡績製)によるPCRを行った。
【0031】
増幅したDNA断片(約2.1kbp)を制限酵素EcoRIにて切断し、精製した後、予め用意したpKK /EcoRI −SmaI(ファルマシア製)に連結した。この連結したプラスミドpKK /6×His /α−グルコシダーゼでエシェリヒア・コリ JM109を形質転換して、6×His /α−グルコシダーゼ融合蛋白質(α−グルコシダーゼのN末端部に6個のヒスチジンを連結した融合蛋白質)を産生する形質転換体を取得した。6×His /α−グルコシダーゼ融合蛋白質の発現はα−グルコシダーゼ活性の有無により確認した。
【0032】
次に、上記形質転換体をイソプロピル−β−D−チオガラクトピラノシド(以下、IPTGと表す;最終濃度0.2mM)にて誘導培養することにより、6×His /α−グルコシダーゼ融合蛋白質を大量発現させた。
【0033】
上記融合蛋白質を磁性化Ni−アガロース担体(英国Scigen社製)を用いて、(1)細胞破砕後の上清のみ吸着、(2)細胞破砕液をそのまま吸着、(3)細胞破砕と同時に吸着の3方法にて精製した。また、従来の非磁性化担体を用いた一般的な精製法の例として、クローンテック社のTALON、キアゲン社のNi−NTAを用いて同様に(1)の方法で精製した。
【0034】
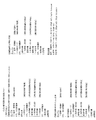
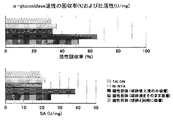
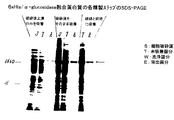
(1)〜(3)の精製の操作方法および使用試薬を図1に示す。固液分離は磁性担体は磁性スタンド、TALON、Ni−NTAは遠心分離にて行っている。それぞれの精製方法により得られた溶出液のα−グルコシダーゼ活性の回収率および比活性(以下、SAとも表す)を図2、SDS−ポリアクリルアミドゲル電気泳動(SDS−PAGE)の結果を図3に示す。
【0035】
検討の結果、図2のように、クローンテック社のTALON、キアゲン社のNi−NTAならびに磁性化Ni−アガロース担体を用いて細胞破砕後の上清のみを吸着して精製した場合、活性回収率が約30%であった。しかしながら、磁性化Ni−アガロース担体を用いて破砕液をそのまま吸着させた場合、および破砕と同時に吸着して精製した場合、活性回収率がそれぞれ約65%、約52%と倍増した。また、SAにおいても回収率と同様な増加傾向が認められた。
【0036】
また、図3に示すSDS−PAGEの結果からも破砕液をそのまま用いた場合、および破砕と同時に吸着して精製した場合、6×His /α−グルコシダーゼ融合蛋白質の回収量が増加していることが明らかである。
【0037】
実施例2 リポプロテインリパーゼ/6×His 融合蛋白質の磁性化Ni−アガロース担体による精製
まず、pUC18 にシュードモナス・アルギノウサ(Pseudomonas aeruginousa )由来のリポプロテインリパーゼ遺伝子を連結したプラスミドpUL11 (ARCHIVES OF BIOCHEMISTRY AND BIOPHYSICS 第296巻,第2号,第505〜513頁,1992年)を鋳型に、リポプロテインリパーゼ遺伝子の5’末端側に位置するpUC18 に由来するプライマー(5’-CAC TTT ATG CTT CCG GCT CGT ATG TTG- 3’)およびリポプロテインリパーゼ遺伝子の3’末端部に相補的な25個のヌクレオチド配列とその5’末端にBglII 認識配列、6個のヒスチジンコード配列、終止コドン(TGA)、Eco47I認識配列の順につなげたプライマー(5’-GTC AGG TCC TAG TGA TGG TGA TGG TGA TGA GAT CTC AGG CTG GCG TTC TTC AGG CGG TTG- 3’)にて、KOD DNAポリメラーゼ(東洋紡績製)によるPCRを行った。
【0038】
増幅したDNA断片(約1.3kbp)を制限酵素NcoI/Eco47Iにて二重切断し、精製した後、予め用意したpUL11 /NcoI-Eco47I に連結した。この連結したプラスミドpUL11 /リポプロテインリパーゼ/6×His でエシェリヒア・コリ JM109を形質転換して、リポプロテインリパーゼ/6×His 融合蛋白質(リポプロテインリパーゼのC末端部に6個のヒスチジンを連結した融合蛋白質)を産生する形質転換体を取得した。
【0039】
次に、この形質転換体をIPTG(最終濃度0.2mM)にて誘導培養することにより、リポプロテインリパーゼ/6×His 融合蛋白質を発現させた。リポプロテインリパーゼ/6×His 融合蛋白質の発現はC末端にある6×His を認識する抗体(インビトロジェン社製)を用いてウエスタンブロットにて確認した。ウエスタンブロットはImaging high -Western-(東洋紡績製)にて、その取扱説明書通りに行った。
【0040】
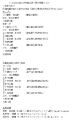
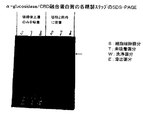
実施例1と同様に該融合蛋白質を磁性化Ni−アガロース担体を用いて、(1)細胞破砕後の上清のみ吸着、(2)細胞破砕と同時に吸着の2方法にて精製した。(1)、(2)の精製の操作方法および使用試薬は図1と同様である。それぞれの精製方法により得られた各精製ステップのSDS−PAGEの結果を図4に示す。
【0041】
図4に示すSDS−PAGEの結果から、細胞破砕後の上清のみを吸着して精製した場合、リポプロテインリパーゼ/6×His 融合蛋白質の回収は認められなかった。しかしながら、磁性化Ni−アガロース担体を用いて破砕と同時に吸着して精製した場合、数本のマイナーバンドも認められるが、目的の融合蛋白質が特異的に精製できることが明らかとなった。
【0042】
実施例3 α−グルコシダーゼ/Cellose binding domain(CBD)融合蛋白質の磁性化セルロース担体による精製
クロストリジウム・ステルコラリウム(Clostrodium stercorarium)由来のキシラナーゼA遺伝子をコードしている領域を連結しているプラスミドpXYN(Sakka, K. et al., Biosci.Biotech.Biochem. 第57巻,第237〜277頁,1993年)を鋳型に、Cellose binding domain(CBD)の5’末端に相補的な27個のヌクレオチド配列とその5’末端にMroI,BglII 認識配列をつなげたプライマー(5’-CCC TCC GGA AGA TCT TCA CCA GTG CCT GCA CCT GGT GAT AAC- 3' )およびCBD遺伝子の3’末端に相補的な20個のヌクレオチド配列とその5’末端に終止コドン(TAA),KpnI,EcoRI 認識配列をつなげたプライマー(5’-CCG AAT TCG GTA CCC TTA AGT TCC TGA TTT TGA G- 3’)にて、KOD DNAポリメラーゼ(東洋紡績製)によるPCRを行った。
【0043】
増幅したDNA断片(約500bp)を制限酵素BglII /EcoRI にて二重切断し、精製した後、点突然変異にてα−グルコシダーゼ遺伝子の3’末端部に制限酵素BglII 認識配列を挿入したプラスミドpBST(Appl.Microbiol.Biotechnol.第44巻,第629〜634頁,1996年;実施例1参照)を制限酵素BglII /EcoRI で二重切断したものに連結した。α−グルコシダーゼとCBDは予め翻訳フレームが合致するように設計してある。この連結したプラスミドpUC18 /α−グルコシダーゼ/CBDでエシェリヒア・コリ JM109を形質転換して、α−グルコシダーゼ/CBD融合蛋白質(α−グルコシダーゼのC末端部にCBDを連結した融合蛋白質)を産生する形質転換体を取得した。α−グルコシダーゼ/CBD融合蛋白質の発現はα−グルコシダーゼ活性の有無により確認した。
【0044】
次に、この形質転換体をIPTG(最終濃度0.2mM)にて誘導培養することにより、α−グルコシダーゼ/CBD融合蛋白質を大量発現させた。この融合蛋白質を磁性化セルロース担体(米国Cortex社製)を用いて、実施例2と同様に(1)細胞破砕後の上清のみ吸着、(2)細胞破砕と同時に吸着の2方法にて精製した。
【0045】
(1)、(2)の精製の操作方法および使用試薬を図5に示す。固液分離は磁性担体は磁性スタンドにて行っている。それぞれの精製方法により得られた溶出液のα−グルコシダーゼ活性の回収率および比活性(SA)を図6に、SDS−PAGEの結果を図7に示す。
【0046】
図5のように、磁性化セルロース担体を用いて細胞破砕後の上清のみを吸着して精製した場合、活性回収率が1.2%であった。しかしながら、磁性化セルロース担体を用いて破砕と同時に吸着して精製した場合、活性回収率が20%と著しく上昇した。また、SAにおいても回収率と同様な増加傾向が認められた。
【0047】
また、図7のSDS−PAGEの結果からも破砕と同時に吸着して精製した場合、α−グルコシダーゼ/CBD融合蛋白質の回収量が増加していることが明らかである。
【0048】
上記の様に実施例1と全く同様な傾向が認められており、目的蛋白質の疎水性が比較的強い場合、破砕上清のみをリガンドとの吸着反応に用いる時には、親和性を持つポリペプチド領域が目的蛋白質の内部に潜り込む、融合蛋白質が凝集する、あるいは目的蛋白質が細胞破砕片と非特異吸着する現象により、上清に抽出される目的蛋白質量が減少し、リガンドとの吸着率が低下するものと思われる。そして、目的蛋白質の回収が不十分となり、それがSA差に反映されているものと思われる。
【0049】
一方、破砕懸濁液にそのまま担体を添加して精製した場合、或いは破砕と同時に担体への吸着を行って精製した場合は、細胞破砕片に非特異吸着したHis-tag 融合蛋白質(蛋白質のC末端もしくはN末端に6×His が結合したものをいう)まで担体との特異吸着により精製することができ、目的蛋白質の回収率が増加して精製度(SA)が上昇したものと思われる。
【0050】
【発明の効果】
上述したように、本発明のポリペプチドの精製方法を利用することにより、従来から行われている方法に比べて、特に比較的疎水性の強い融合蛋白質においても効率よく精製できるようになった。
【図面の簡単な説明】
【図1】 実施例1および2における、6×His 融合蛋白質の精製フローを示す図である。
【図2】 実施例1における、α−グルコシダーゼの回収率(%)および比活性(U/mg)を示す図である。
【図3】 実施例1における、6×His /α−グルコシダーゼ融合蛋白質の各精製ステップのSDS−PAGEを示す図である。
【図4】 実施例2における、6×His /リポプロテインリパーゼ融合蛋白質の各精製ステップのSDS−PAGEを示す図である。
【図5】 実施例3における、α−グルコシダーゼ/CBD融合蛋白質の精製フローを示す図である。
【図6】 実施例3における、α−グルコシダーゼの回収率(%)および比活性(U/mg)を示す図である。
【図7】 実施例3における、α−グルコシダーゼ/CBD融合蛋白質の各精製ステップのSDS−PAGEを示す図である。
Claims (15)
- 目的とするポリペプチドを産生する細胞から該ポリペプチドを精製する方法において、細胞を破砕する工程と、該細胞を破砕した溶液から破砕片を取り除くことなくそのまま該ポリペプチドとの親和性を有するリガンドが結合された磁性担体に該ポリペプチドを吸着させる工程とを同時に行った後、該ポリペプチドを回収することを特徴とするポリペプチドの精製方法。
- ポリペプチドが融合蛋白質である請求項1に記載の精製方法。
- ポリペプチドが、リガンドとの親和性を有するポリペプチド領域が該ポリペプチドのアミノ末端アミノ酸もしくはカルボキシ末端アミノ酸に直接的または間接的に結合してなる融合蛋白質である請求項1〜2のいずれかに記載の精製方法。
- リガンドがニッケルイオンである請求項1〜3のいずれかに記載の精製方法。
- 磁性担体が磁性化アガロース担体もしくは磁性化セルロース担体である請求項1〜4のいずれかに記載の精製方法。
- ポリペプチドが、セルロースとの親和性を有するポリペプチド領域が該ポリペプチドのアミノ末端アミノ酸もしくはカルボキシ末端アミノ酸に直接的または間接的に結合してなる融合蛋白質である請求項1〜2のいずれかに記載の精製方法。
- 磁性化セルロース担体もしくはセルロースを結合せしめた磁性担体を用いる請求項6記載の精製方法。
- ポリペプチドを産生する細胞が微生物である請求項1〜7のいずれかに記載の精製方法。
- ポリペプチドを産生する細胞がエシェリヒア・コリ(Escherichia coli)である請求項1〜7のいずれかに記載の精製方法。
- ポリペプチドを産生する細胞を超音波により破砕する請求項1〜9のいずれかに記載の精製方法。
- ポリペプチドを産生する細胞を酵素により破砕する請求項1〜9のいずれかに記載の精製方法。
- 酵素がリゾチームもしくはβ−1,3−グルカンラミナリペンタオヒドロラーゼである請求項11記載の精製方法。
- 請求項1〜12のいずれかに記載の方法で精製して得られたポリペプチドを選択的開裂により除去することを特徴とするポリペプチドの精製方法。
- 請求項1〜12のいずれかに記載の方法で精製して得られたポリペプチドの選択的開裂にプロテアーゼを用いる請求項13記載の精製方法。
- プロテアーゼがトロンビン、Factor Xa、エンテロキナーゼよりなる群から選ばれた少なくとも1種である請求項14に記載の精製方法。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP26161998A JP4196232B2 (ja) | 1998-09-16 | 1998-09-16 | ポリペプチドの精製方法およびキット試薬 |
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP26161998A JP4196232B2 (ja) | 1998-09-16 | 1998-09-16 | ポリペプチドの精製方法およびキット試薬 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2000083694A JP2000083694A (ja) | 2000-03-28 |
| JP4196232B2 true JP4196232B2 (ja) | 2008-12-17 |
Family
ID=17364422
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP26161998A Expired - Fee Related JP4196232B2 (ja) | 1998-09-16 | 1998-09-16 | ポリペプチドの精製方法およびキット試薬 |
Country Status (1)
| Country | Link |
|---|---|
| JP (1) | JP4196232B2 (ja) |
-
1998
- 1998-09-16 JP JP26161998A patent/JP4196232B2/ja not_active Expired - Fee Related
Also Published As
| Publication number | Publication date |
|---|---|
| JP2000083694A (ja) | 2000-03-28 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| Morag et al. | Expression, purification, and characterization of the cellulose-binding domain of the scaffoldin subunit from the cellulosome of Clostridium thermocellum | |
| Berdichevsky et al. | Matrix-assisted refolding of single-chain Fv–cellulose binding domain fusion proteins | |
| US10766933B2 (en) | Mutated immunoglobulin-binding protein having increased alkaline tolerance | |
| JP2023502335A (ja) | スプリットインテインシステムを使用したタンパク質精製 | |
| EP4450515A1 (en) | Domain c of mutated protein a, and application thereof | |
| CN111183221A (zh) | 用于o-糖蛋白的蛋白酶和结合多肽 | |
| US8536302B2 (en) | Dockerin polypeptide and method of purifying recombinant fused protein using the same | |
| JPWO2006004067A1 (ja) | ブレビバチルス属細菌を用いたプロテインa様蛋白質の生産方法 | |
| HK1198445A1 (en) | On-column enzymatic cleavage | |
| CN112063643A (zh) | 一种用于检测细菌中膜蛋白相互作用的表达载体及方法 | |
| JP7731146B2 (ja) | アルカリ耐性が増加された免疫グロブリン結合蛋白質変異体およびその用途 | |
| EP1668135B1 (en) | A non-denaturing process to purify recombinant proteins from plants | |
| JP4088584B2 (ja) | 融合タンパク質から目的タンパク質を分離する方法。 | |
| EP1981978B1 (en) | Affinity polypeptide for purification of recombinant proteins | |
| US8822640B2 (en) | Tetrameric streptavidin mutein with reversible biotin binding capability | |
| JP2000083694A (ja) | ポリペプチドの精製方法およびキット試薬 | |
| CN121554544B (zh) | 一种NFT蛋白及其制备方法和应用,以及一种NusA或NusA融合蛋白的纯化方法 | |
| TWI712691B (zh) | 葡聚醣親和性標籤及其應用 | |
| JP2022034946A (ja) | 免疫グロブリン結合活性を有するポリペプチド | |
| JP5020487B2 (ja) | 融合タンパク質発現用新規dna及び該dnaを用いたタンパク質の製造方法 | |
| CN119080892A (zh) | 突变的蛋白a结构域及其应用 | |
| JP2007244285A (ja) | 抗体結合性ペプチド | |
| CN115851656A (zh) | 一种乙肝病毒聚合酶的制备方法 | |
| CN115851794A (zh) | 一种乙肝病毒x蛋白质的制备方法 | |
| KR100380886B1 (ko) | 재조합 사람 글루카곤 수용체 단편의 제조방법 및 용도 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20050823 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20080612 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20080801 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20080904 |
|
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20080917 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20111010 Year of fee payment: 3 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20111010 Year of fee payment: 3 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20121010 Year of fee payment: 4 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20121010 Year of fee payment: 4 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20131010 Year of fee payment: 5 |
|
| LAPS | Cancellation because of no payment of annual fees |