JP4355287B2 - ホッコクアカエビ由来の新規なカテプシンl様システインプロテアーゼ - Google Patents
ホッコクアカエビ由来の新規なカテプシンl様システインプロテアーゼ Download PDFInfo
- Publication number
- JP4355287B2 JP4355287B2 JP2004513490A JP2004513490A JP4355287B2 JP 4355287 B2 JP4355287 B2 JP 4355287B2 JP 2004513490 A JP2004513490 A JP 2004513490A JP 2004513490 A JP2004513490 A JP 2004513490A JP 4355287 B2 JP4355287 B2 JP 4355287B2
- Authority
- JP
- Japan
- Prior art keywords
- cathepsin
- protein
- dna
- amino acid
- acid sequence
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Lifetime
Links
Images







Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/48—Hydrolases (3) acting on peptide bonds (3.4)
- C12N9/50—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25)
- C12N9/64—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25) derived from animal tissue
- C12N9/6402—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25) derived from animal tissue from non-mammals
- C12N9/6405—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25) derived from animal tissue from non-mammals not being snakes
- C12N9/641—Cysteine endopeptidases (3.4.22)
Landscapes
- Health & Medical Sciences (AREA)
- Engineering & Computer Science (AREA)
- Life Sciences & Earth Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Biomedical Technology (AREA)
- Organic Chemistry (AREA)
- Zoology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Wood Science & Technology (AREA)
- Genetics & Genomics (AREA)
- Microbiology (AREA)
- Biotechnology (AREA)
- Molecular Biology (AREA)
- Biochemistry (AREA)
- General Engineering & Computer Science (AREA)
- General Health & Medical Sciences (AREA)
- Medicinal Chemistry (AREA)
- Enzymes And Modification Thereof (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Peptides Or Proteins (AREA)
- Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)
Description
[技術分野]
本発明はホッコクアカエビより抽出した新規カテプシンL様酵素、その精製方法、ホッコクアカエビより新たに同定された新規プロテアーゼであるカテプシンL様システインプロテアーゼ酵素をコードするポリヌクレオチド、それによりコードされるポリペプチド、このようなポリヌクレオチドおよびポリペプチドの使用に関する。
【0002】
[背景技術]
プロテアーゼは、タンパク質のペプチド結合を加水分解する酵素の総称で、微生物、植物および動物に広く分布しており、触媒基や基質特異性の異なるプロテアーゼが数多く単離されている。その応用範囲も多岐にわたっており、例えば、食品の改質剤用、洗剤用、化粧品原料用、ビールの清澄剤用、皮革なめし剤用、医薬用などに利用されている。
【0003】
プロテアーゼは、タンパク質のペプチド結合を加水分解する最も重要な酵素群の一つで、微生物、植物および動物に広く分布しており、多種多様な生物学的プロセスに関与する。また、プロテアーゼは、触媒基に基づいて、アスパラギン酸−、システイン−、セリン−、メタロ−プロテアーゼの大きく4つのファミリーに分類されている。これらの酵素の分子的作用機序は広く研究されている。活性中心にSH基を有するSHプロテアーゼ(システインプロテアーゼ)には、ブロメライン等の酵素が含まれている。このシステインプロテアーゼのパパインスーパーファミリーに属するカテプシンは、カテプシンLサブファミリーとカテプシンBサブファミリーに分けられる。カテプシンLサブファミリーは、カテプシンH,L,S,F,V,及びWが含まれ、2つの重要なモチーフ、散在するモチーフであるER(F/W)NINモチーフと、GNFDモチーフで、前者のER(F/W)NINモチーフは、カテプシンBファミリー並びにカテプシンC,O、及びXには存在しない。
【0004】
カテプシンLは、哺乳類ではリソゾームに存在し、強力なエンドプロテアーゼ活性があるが、エキソ型活性は示さないという特徴がある。現在までのところ、カテプシンL及びカテプシンL様システインプロテアーゼは数種類の動物から同定され、配列が決定されている。以下にそれを列挙する。
【0005】
Bombyx mori(domestic silkworm)
Yamamoto Y.,Takimoto K.,Izumi S.,Toriyama−Sakurai M.,Kageyama T.,Takahashi S.Y.Molecular cloning and sequencing of cDNA that encodes cysteine proteinase in the eggs of the silkmoth,Bombyx mori.J.Biochem.116(6):1330−1335(1994).
Bos taurus(cow)
Unpublished.
Drosophila melanogaster(fruit fly)
Tryselius Y.,Hultmark D.Cysteine proteinase 1(CP1),a cathepsin L−like enzyme expressed in the Drosophila melanogaster haemocyte cell line mbn−2.Insect Mol.Biol.6(2):173−181(1997).
Homo sapiens(human)
Joseph L.J.,Chang L.C.,Stamenkovich D.,Sukhatme V.P.Complete nucleotide and deduced amino acid sequences of human and murine preprocathepsin L.Anabundant transcript induced by transformation of fibroblasts.J.Clin.Invest.81(5):1621−1629(1988).
Homarus americanus(American lobster)
Laycock M.V.,MacKay R.M.,Di Fruscio M.,Gallant J.W.Molecular cloning of three cDNAs that encode cysteine proteinases in the digestive gland of the American lobster(Homarus americanus).FEBS Lett.292:115−120(1991).Mus musculus(Mouse)
Portnoy D.A.,Erickson A.H.,Kochan J.,Ravetch J.V.,Unkeless J.C.Cloning and characterization of amouse cysteine proteinase.J.Biol.Chem.261:14697−14703(1986).
Nephrops norvegicus(Norway lobster)
Le Boulay C.,Van Wormhoudt A.,Sellos D.Molecular cloning and sequencing of two cDNAs encoding cathepsin L−related cysteine proteinases in the nervous system and in the stomach of the Norway lobster(Nephrops norvegicus).Comp.Biochem.Physiol.111:353−359(1995).
Penaeus vannamei(Pacific white shrimp)
Le Boulay C.,Van Wormhoudt A.,Sellos D.Cloning and expression of cathepsin L−like protcinases in the hepatopancreas of the shrimp penacus vannamei during the intermoltcycle.J.Comp.Physiol.B 166:310−318(1996).
Rattus norvegicus(Norway rat)
Ishidoh K.,Towatari T.,Imajoh S.,Kawasaki H.,Kominami E.,Katunuma N.Suzuki K.Molecular clonig and sequencing of cDNA for rat cathepsin L.FEBS Lett.223:69−73(1987).
【0006】
カテプシンLのコラーゲン分解活性については、ラットのカテプシンLが酸性条件下、37℃でコラーゲンを分解するという報告がある。Barrett,A.J.and Kirschke,H.Cathepsin B,Cathepsin H,and Cathepsin L.Methods Enzymol.80,535−561.(1981)
【0007】
[発明の開示]
上記に示したカテプシンLは、酸性条件下に至適pHがあり、至適温度が50〜70℃である。上記文献の報告の内には、遺伝子のクローニングのみで酵素が特定されず性状が調べられていないものもある。いずれにせよ、中性からアルカリ性条件下、低温領域においても高い活性を保持するカテプシンLは現在まで知られていない。もし、中性からアルカリ性条件下、低温領域においても高い活性を保持するカテプシンLを見出すことができれば、蛋白質の変性による特性の悪化を避けて蛋白質材料の性質を改変することが可能となり、食品の改質剤用、洗剤用、化粧品原料用、医薬用などに応用する際に、非常に有用な酵素を提供できることとなる。
【0008】
本発明者等は、低温領域においてもコラーゲンを分解するようなプロテアーゼを自然界に求め、鋭意スクリーニングを重ねた結果、偶然にも、日本産ホッコクアカエビを用いることで、その肝膵臓中に低温領域においても活性を保持する新規プロテアーゼを見出すことに成功した。本プロテアーゼは、カテプシンL様システインプロテアーゼである。
【0009】
ホッコクアカエビは、北太平洋、北大西洋に分布し、通常、−1.6〜5℃の低温環境下に生息する低温適応種である。低温適応種の酵素はそれらに対応する哺乳類の酵素より、実質的に高い触媒効率を示すことがいくつか報告されている。例えば、プロテアーゼの中でも特によく研究されているセリンプロテアーゼのトリプシンでは、ウシトリプシンと比較してサケトリプシンの触媒効率は40倍高いことが報告されている。
【0010】
本発明者等は、スクリーニングに際し、冷凍されていない生のホッコクアカエビから肝膵臓を取り出すことにより、肝膵臓の細胞が冷凍により破壊されることを防ぎ、肝膵細胞中の酵素が分解を受けることなく抽出できるように工夫をした。更に、本発明者らは、急速凍結した肝膵臓から、本発明のカテプシンL様システインプロテアーゼを精製する方法もみいだした。
【0011】
本カテプシンL様蛋白質は、ホッコクアカエビから、イオン交換カラム、ゲル濾過カラム、吸着カラム、塩析、透析、限外ろ過、遠心分離等、を適宜組み合わせることにより、精製できる。例えば、生のホッコクアカエビから肝膵臓を摘出し、ホモジェナイズし、脱脂処理後、蛋白質を硫安沈殿させた後、再度溶解し、上清を陰イオン交換カラムで精製、吸着クロマトグラフィーで分離し、再度イオン交換クロマトグラフィーで精製して調製できる。陰イオン交換クロマトグラフィーとしては、例えば、Qセファロース、MonoQが、吸着クロマトグラフィーとしては、例えば、ハイドロキシアパタイトを用いることができる。解凍したホッコクアカエビの肝膵臓からも、同様に、ホモジェナイズし、脱脂処理後、遠心分離し蛋白質を沈殿させた後、再度溶解し、透析後、透析物を陰イオン交換カラムで精製、ゲルろ過クロマトグラフィーで分離し、吸着クロマトグラフィーで精製して調製できる。陰イオン交換クロマトグラフィーとしては、例えば、Qセファロース、MonoQが、ゲルろ過クロマトグラフィーとしては、例えば、Superdexが、吸着クロマトグラフィーとしては、例えば、ハイドロキシアパタイトを用いることができる。
【0012】
こうして精製されたホッコクアカエビ カテプシンL様システインプロテアーゼは、(1)分子量は、約30KDa、(2)至適PHは、約7〜8、(3)至適温度は、約35℃、(4)コラーゲン分解性を示す、及び(5)カテプシンL様活性を示ことが分かった。
【0013】
さらに、遺伝子工学的手法を駆使して種々研究した結果、この酵素をコードする遺伝子をクローニングすることに成功し、遺伝子の塩基配列および演繹アミノ酸配列のすべてを明らかにし、本発明を完成させるに至った。また、本酵素と同様の立体構造を持つことが予想されるアイソフォームをコードする遺伝子のクローニングにも成功し、酵母を用いた系で発現させることで性状を明らかにした。
【0014】
発現されたホッコクアカエビ カテプシンL様システインプロテアーゼのアイソフォームは、(1)分子量は、約30KDa、(2)至適PHは、約6〜8、(3)至適温度は、約40℃(20℃でも活性を有していた)、(4)コラーゲン分解性を示す、及び(5)カテプシンL様活性を示していた。
【0015】
これらのホッコクアカエビ由来新規カテプシンL様システインプロテアーゼをそれぞれホッコクアカエビ・カテプシンL1およびホッコクアカエビ・カテプシンL2と命名した。なお、ホッコクアカエビ・カテプシンL1は、NSL1又はNsCtLと、ホッコクアカエビ・カテプシンL2はNSL2、ホッコクアカエビ・システインプロテアーゼ、NsCys、又はCrustapainと呼ぶこともある。
【0016】
ホッコクアカエビ・カテプシンL1及びL2をコードする遺伝子を適切な発現ベクターに組み換え、該組み換え発現ベクターを適切な宿主に導入することにより、ホッコクアカエビ・カテプシンL1又はL2を遺伝子組み換え法により生産することができる。発現ベクターとしては、周知の種々のベクターを用いることができるが、例えば、宿主を大腸菌とする場合には、一連のpURベクター、pATHベクター、pGEXベクター等が挙げられ、COSやCHO等動物細胞を宿主として用いる場合には、pXM、pDC201等のベクターを用いることができる。
【0017】
例えば、大腸菌を用いた系では、発現ベクターpGEX(アマシャムファルマシア)、pET39b(Novagen)、pRSET(Invitorgen)、に本発明の遺伝子を挿入し、大腸菌に導入して、発現誘導することができた。SDS−PAGEにより、目的の分子量を持つ遺伝子が発現されたことを確認した。また、酵母を用いた系では、本遺伝子を挿入した酵母発現ベクターpPICZαをエレクトロポレーション法により、宿主酵母P.pastorisX−33株又はKM71H株に導入し、高濃度(2000μg/ml)のzeocinを含む培地で生える形質転換体を選別した。ゼラチンザイモグラフィーで活性を確認したところ、目的の酵素に相当するサイズのバンドが検出された。
【0018】
本発明は、上記単離された2つのカテプシンL様プロテアーゼ及びその天然に存在する変異体を包含するものである。更に、本発明には、ホッコクアカエビ・カテプシンL1又はL2のアミノ酸配列において1若しくは数個のアミノ酸が欠失、置換若しくは付加されたアミノ酸配列からなり、かつカテプシンL様酵素活性を有する蛋白質を包含する。また、本発明は、これらのカテプシンL様酵素のプレプロ体をも包含する。また、これらカテプシンL1又はL2とアミノ酸配列の全部または1部と80%以上同一であるポリペプチドをも包含する。更に、本発明は、これらカテプシンL様酵素のシグナルペプチド及びプロペプチドをも包含する。これらプロペプチドは本件カテプシン様酵素の阻害剤としても有用である。そして、本発明は、これら酵素、そのシグナルペプチド、及びプロペプチドをコードするDNAも包含する。
【0019】
例えば、本発明には、上記ホッコクアカエビ・カテプシンL1、ホッコクアカエビ・カテプシンL2、又はそれぞれのプレプロ体の相補鎖からなるDNAとストリンジェントな条件下でハイブリダイズし、かつカテプシンL様酵素活性を有する蛋白質をコードするDNAを包含する。
【0020】
なお、ストリンジェントな条件下とは、例えば、120℃で20分間処理してDNAを結合させたHybond N+ナイロンメンブレン(アマシャムファルマシア)をチャーチリン酸塩緩衝液(0.5M Na2HPO4,1mM EDTA、7%SDS)中、65℃で5分間処理し、プレハイブリダイゼーションを行う。ハイブリダイゼーションは同緩衝液中、後述の操作で得られたプローブを加え、65℃で17時間行う。ハイブリダーゼーション後のメンブレンは室温で20分間、0.1%SDSを含む2xSSC(standard saline citrate;1xSSCは150mM NaCl、15mM sodium citrate、pH7.0)で処理下後、0.1%SDSを含む1xSSC中65℃で20分間の洗浄を2回行う。さらに0.1%SDSを含む0.1xSSC、65℃で20分間処理し洗浄を完了する。X線フィルムへの感光は−80℃で24時間行う。
【0021】
プローブの作成では、例えば、PCRにより増幅したcDNA断片を、Takara randam primer DNA labeling kit Ver.2(Takara)を用いて、[α32P]−dCTPによるプローブの標識を行う。その後、遠心フィルター(Millipore)を用いて未反応のアイソトープを除去する。
【0022】
更に、本発明には、ホッコクアカエビ・カテプシンL1,ホッコクアカエビ・カテプシンL2,そのプレプロ体のアミノ酸配列に対し1若しくは数個のアミノ酸が欠失、置換若しくは付加されたアミノ酸配列からなり、かつカテプシンL様酵素活性を有する蛋白質をコードするDNA、又は、カテプシンL様酵素活性を有する蛋白質のプレプロ体をコードするDNAも包含される。
【0023】
又、本発明には、ホッコクアカエビ・カテプシンL1,ホッコクアカエビ・カテプシンL2、そのプレプロ体をコードするDNAに対して、1〜100個,好ましくは1〜10個,更に好ましくは1〜数個の塩基が、欠失、置換若しくは付加したDNAであって、ホッコクアカエビ・カテプシンL1又はL2の活性を有する蛋白質をコードするDNAを包含するものである。
【0024】
また、ホッコクアカエビ・カテプシンL1又はL2のアミノ酸配列の全部または1部と80%以上、好適には90%以上、特に好適には95%以上同一であるポリペプチドの産生能を有するDNAを包含する。更にこれらのカテプシンL又はプレプロカテプシンLをコードするDNA配列に対し、相同性が80%以上、好適には、90%以上、特に好適には95%以上となるカテプシンL様酵素活性を有する蛋白質又はプレプロカテプシンL様酵素として機能する蛋白質をコードするDNAを包含する。
【0025】
本発明は、これら遺伝子を検出するためのプライマー、例えば、L1又はL2の塩基配列中の連続する15塩基以上の配列又は当該配列に1又数個の欠失、置換、付加がなされた塩基配列を包含する。
【0026】
本発明のホッコクアカエビ・カテプシンL1又はL2のS2ポケット(Schechter,I.and Berger,A.(1967)On the size of the active site in proteinases,I.Papain.Biochem.Biophys.Res.Commun.27,157−162の表記に従う)は、主として疎水性で、成熟型パパインのアミノ酸配列の番号で67,68,157,160,及び205からなっており、ホッコクアカエビ・カテプシンL1については、成熟型パパインのアミノ酸配列の番号67及び68がVal、同133がCys、157がIle、160がAla、205がGlnであり、ホッコクアカエビ・カテプシンL2については、同67がTrp、同68がPro、同133がCys、同157がAla、同160がAla、同205がTyrである。
【0027】
本発明には、ホッコクアカエビ・カテプシンL1又はL2のアミノ酸配列において1若しくは数個のアミノ酸が欠失、置換若しくは付加されたアミノ酸配列からなり、かつホッコクアカエビ・カテプシンL1又はL2と基質特異性を同じくするカテプシンL様酵素活性を有する蛋白質であって、ホッコクアカエビ・カテプシンL1又はL2のS2ポケットを保持するように、成熟型パパインのアミノ酸配列番号で(1)同67及び同68がVal、同133がCys、同157がIle、同160がAla、及び同205がGlnであるか、又は、(2)同67がTrp、同68がPro、同133がCys、同157がAla、同160がAla、及び同205がTyr、であることを特徴とするタンパク質を包含する。
【0028】
[発明を実施するための最良の形態]
実施例は例示であって、本発明を限定するものではない。
【0029】
[実施例1] ホッコクアカエビからカテプシンL様酵素の分離・精製
<ホッコクアカエビ・カテプシンL1の精製>
漁協より生きたホッコクアカエビを購入し、解剖して肝膵臓を採取した。この肝膵臓に2倍量の50mM Tris−HCl(pH7.5)を加え、ホモジェナイズした。次に、1/5量のテトラクロロメタンを加え、4℃で1時間、攪拌して脱脂した後、遠心分離(18,000g、4℃、30分間)して、得られた上清を硫安分画に供した。17.6〜47.2%(w/v)硫安を、5mM CaCl2、0.02%NaN3を含む20mM Tris−HCl(pH7.5)(Buffer A)に再溶解して、透析した後、Buffer Aで平衡化したQセファロースカラム(アマシャムファルマシア)に供した。Buffer Aで非吸着画分を洗浄後、Buffer Aと0.6M NaClを含むBuffer Aとの直線的勾配で溶出した。
【0030】
活性画分を回収して、10mMリン酸カリウム緩衝液(pH6.9)に対して透析後、同緩衝液で平衡化したハイドロキシアパタイト(バイオラッド)のカラムに添加し、同緩衝液と400mMリン酸カリウム緩衝液(pH6.9)との直線的勾配で溶出した。さらに、活性画分をMonoQカラムに供した。溶出はBuffer Aと1M NaClを含むBuffer Aとの直線的勾配で行った。以上の方法で、ホッコクアカエビ・カテプシンL1を精製した。合成基質を用いて測定した各精製段階の比活性を表1および表2に示した。
【0031】
<酵素活性測定法>
各精製段階の画分および精製した酵素のコラーゲン分解活性は、酸可溶性I型コラーゲン(和光純薬)を基質として、pH7.5、25℃で30分間反応後、SDS−PAGE法により確認した(図4)。
また、以下に示す合成基質を用いた方法で精製過程の酵素活性を定量的にモニタリングした。
【0032】
コラゲナーゼ様酵素の活性を測定する基質として、DNP−Pro−Gln−Gly−Ile−Ala−Gly−Gln−D−Arg(以下、DNP−ペプチドと記す)(ペプチド研究所)を用いた。150mM NaClを含む50mM Tris−HCl緩衝液(pH7.5)に1mMの濃度でDNP−ペプチドを溶解して基質溶液とした。この基質溶液100mlに各画分の酵素溶液を等量加え、25℃で、10分間反応させた。1N HClを0.5ml加えて反応を停止させ、酢酸エチルとn−ブタノールの混液(1:0.15)を加えた後、激しく振盪した。次いで、遠心分離後、上清の吸光度を365nmで測定した。1分間に1μmolの基質を加水分解するときの酵素量を1unitとした。
【0033】
トリプシン様酵素およびエラスターゼ様酵素の活性を測定する基質として、Bz−DL−Arg−pNA(BAPA)、Suc−(Ala)3−pNA(STANA)(ペプチド研究所)、Suc−Ala−Ala−Pro−Arg−pNA(AAPR)、Suc−Ala−Ala−Pro−Leu−pNA(AAPL)(BACHEM)(なお、BzはBenzoylを、pNAはp−Nitroanilideを、SucはSuccinylをそれぞれ表す。)を用いた。BAPAの分解性によりトリプシン様酵素活性の有無が、STANAの分解性によりエラスターゼ様酵素活性の有無が確認できる。また、AAPL及びAAPRは、カニ由来のセリンコラゲナーゼが作用する基質である。ジメチルスルホキシドを用いて、50mMの濃度で基質溶液を調製した。各画分の酵素溶液を150mM NaClを含む50mM Tris−HCl緩衝液(pH7.5)に加えてプレインキュベート後、基質溶液を終濃度0.5mMになるように添加して25℃で、5分間反応させ、遊離したp−ニトロアニリンを405nmで比色定量した。1分間に1μmolの基質を加水分解するときの酵素量を1unitとした。
各画分の蛋白質量は、BSAを標準試料としてBradford法で定量した。
【0034】
【表1】
【表2】
精製したホッコクアカエビ・カテプシンL1はコラゲナーゼの合成基質に対してよく作用した(表1)。また、BAPAに対しては全く作用せず、P2部位にプロリンが配置する基質(AAPL、AAPR)に対して、よく作用した(表2)。
【0037】
更に、カテプシンL様活性の確認のために、Z−Phe−Arg−MCAを基質として用い活性を測定した。ジメチルスルホキシドを用いて20mMの濃度で基質溶液を調製した。酵素溶液を150mMNaClを含む50mMTris−HCl緩衝液(pH7.5)に加えてプレインキュベート後、基質溶液を最終濃度50μMとなるように、添加して25℃で、5分間反応させ、遊離した7−アミノ−4−メチルクマリン(AMC)を励起波長380nm、蛍光波長460nmで蛍光強度を測定した。AMC(ペプチド研究所)を用いて標準曲線を作成して定量し、1分間に1μmolの基質を加水分解するときの酵素量を1Uとした。精製の最終段階で、10.2U/mgの活性が認められた。
【0038】
ホッコクアカエビ・カテプシンL1によるコラーゲンの分解パターンを図4に示した。図に示したように、本酵素は、25℃、30分間の反応でコラーゲンをよく分解した。
ホッコクアカエビ・カテプシンL1のSDS−PAGEパターンを図3に示した。約30kDa付近に単一のバンドとして得られた。
【0039】
また、PAS染色は次のようにして行った。
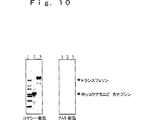
SDS−PAGEした後、12.5%トリクロロ酢酸に30分間浸漬し、蒸留水で30秒洗浄、0.5%過よう素酸溶液(PAS染色用)(和光純薬)に50分浸漬し、蒸留水で10分6回よく洗浄し、Cold Schiff’s Reagent(和光純薬)で50分処理し0.5%亜硫酸水素ナトリウムを含む0.05NHClで10分3回、蒸留水で洗浄し、5%酢酸に浸漬した。これにより、糖鎖を持つことが示唆された。(図10)
【0040】
<至適pH>
活性の測定は、Britton−Robinsonの緩衝液(pH4−13)中で、DNP−ペプチドを用いて25℃で行った。最終的な反応液は、200μl、DNP−ペプチドの終濃度は0.5mM、酵素の終濃度は、1.5μg/mlであった。本酵素の至適pHは、約7〜8であった(図5)。
【0041】
<至適温度>
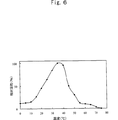
1mM DNP−ペプチド、150mM NaClを含む50mM Tris−HCl緩衝液(pH7.5)を各温度で5分間プレインキュベートした後、酵素を加えて活性を測定した。最終的な反応液は、200μl、DNP−ペプチドの終濃度は0.5mM、酵素の終濃度は、1.5μg/mlであった。本酵素の至適温度は、約35℃であった(図6)。
【0042】
<温度安定性>
150mM NaClを含む50mM Tris−HCl緩衝液(pH7.5)に本酵素(300ng)を加え、各温度(20℃〜70℃)で30分間及び60分間インキュベーションした後、直ちに氷冷した。DNP−ペプチドを基質として、25℃で残存活性を測定した。最終的な反応液は、200μl、DNP−ペプチドの終濃度は0.5mM、酵素の終濃度は、1.5μg/mlであった。本酵素は25℃、1時間および30℃、30分間まで安定であり、50℃、1時間および60℃、30分間で失活した(図7)。
【0043】
[実施例2]
<N末端アミノ酸配列の解析>
精製したホッコクアカエビ・カテプシンL1を電気泳動後、SDSポリアクリルアミドゲルからPVDF膜に転写し、対応するバンドを切出して、プロテインシークエンサーに供した。本酵素のN末端アミノ酸配列は、DTVDWRDKGAVTPVKDQGQであった。相同性検索を行った結果、活性型システインプロテアーゼのN末端近傍に対応していた。
【0044】
[実施例3]
<カテプシンLのクローニング>
決定したN末端アミノ酸配列の一部分であるDWRDKGAを参考にして、オリゴヌクレオチドを作製した。作製したプライマーは、5’−GAY TGG CGN GAY AAR GGN GC−3’(R:A/G、Y:C/T、N:A/G/C/T)である。
【0045】
ホッコクアカエビの肝膵臓よりISOGEN(ニッポンジーン)を用いて、total RNAを調製後、3’RACE System(GIBCO BRL)により、1本鎖cDNAを合成した。その1本鎖cDNAを鋳型にして前述のプライマーと3’RACE SystemのAUAPを用いてPCR(30サイクル、94℃、30秒、55℃、30秒、72℃、1分)を行った。約900bpのPCR産物が得られ、この断片をpGEM−T Easyベクター(Promega)に挿入して、サブクローニングし、3’末端側の塩基配列を決定した。その結果、2種類の配列が得られた。これらの配列を基に、表3に示したアンチセンス鎖のプライマーを作製し、5’RACE System(GIBCO BRL)を用いて得られたPCR断片を、同様にサブクローニングし、5’末端側の塩基配列を決定した。
【0046】
【表3】
さらに、5’末端より表4に示したプライマーを作製して、上述の1本鎖cDNAからホッコクアカエビ・カテプシンL1およびL2をコードする全長のcDNAを単離した。
【0048】
【表4】
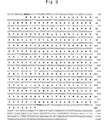
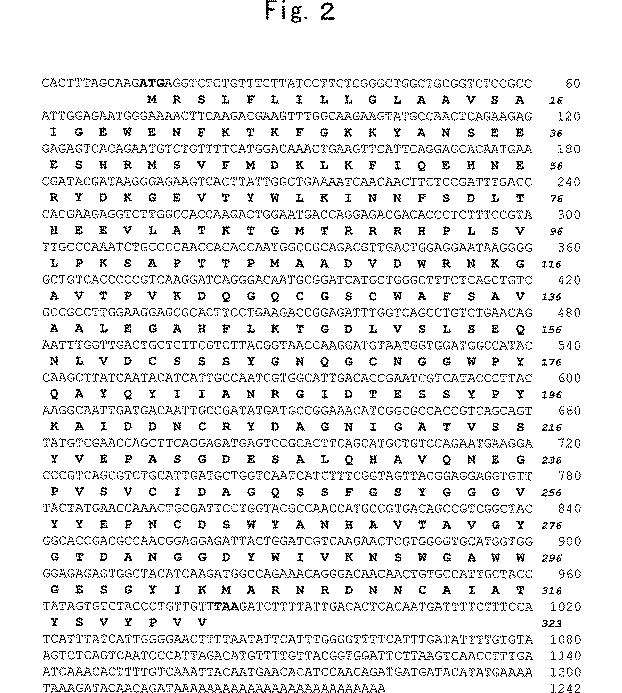
決定したホッコクアカエビ・カテプシンL1及びL2の塩基配列と演繹アミノ酸配列をそれぞれ図1(配列番号1及び2)および図2(配列番号3及び4)に示した。ホッコクアカエビ・カテプシンL1の推定されるシグナル配列(1〜15残基:Met〜Ala)とプロ配列(16〜105:Ser〜Ala)を除いたN末端部分は精製した酵素のN末端アミノ酸配列と完全に一致した。ホッコクアカエビ・カテプシンL1のシグナル配列をコードする塩基は、配列番号1の第29塩基から73塩基であり、プロ配列をコードする塩基は同じく配列番号1及び図1中の第74塩基から343塩基である。又、カテプシンL2の推定されるシグナル配列は1〜14残基のMet〜Valで、プロ配列は15から106残基のSer〜Metで、それぞれをコードする塩基は、配列番号3の第13から54塩基、及び第55から330塩基である。
【0050】
ホッコクアカエビ・プロカテプシンL1およびL2と他生物のプロカテプシンLとのアミノ酸配列の相同性を表5に示す。
【0051】
図8から明らかなように、ホッコクアカエビ・カテプシンL1及びL2は、触媒基のCys,His,Asnが保存されており、パパインスーパーファミリーに属するシステインプロテアーゼである。更に、S−S結合位置も保存されている。そして、近隣結合法により系統樹を作成すること(図9)により、L1及びL2は、いずれもカテプシンL様酵素であることが分かる。
【0052】
【表5】
ホッコクアカエビ・プロカテプシンL1は、アメリカンロブスターのCys protease 2との相同性が57%で最も高かった(表5)。ホッコクアカエビ・プロカテプシンL2はアメリカンロブスターのCys protease 1との相同性が57%で最も高かった(表5)。
【0054】
[実施例4]
ホッコクアカエビの凍結試料からのカテプシンL様酵素の分離・精製
<ホッコクアカエビ・カテプシンL1の粗抽出物>
全ての精製工程は4℃で行われた。−80℃で凍結された肝膵臓が部分的に解凍され2倍量の50mM Tris−HCl(pH7.5、150mMNaCl、3mMNaN3含有)を加え、ポリトロンホモゲナイザーで5分間ホモジェナイズした。次に、1/5量のテトラクロロメタンをゆっくりと攪拌しながら加え、遠心分離(19,000g、30分間)して、脂質を下層のテトラクロロメタンに抽出した。脱脂された上清は、粗抽出物として用いられた。
【0055】
<ホッコクアカエビ・カテプシンL1様プロテアーゼの精製>
粗抽出物は25〜70%(v/v)の冷アセトンで分画され、19,000xgで15分間遠心分離された。得られた沈殿は、50mM Tris−HCl(pH7.5、50mM NaCl含有)(緩衝液1)に再溶解して、同じ緩衝液1で1晩透析した。透析した溶液は、0.45μmフィルターで濾過した後、同じ緩衝液1で平衡化したQ Sepharoseイオン交換カラム(1.6X40cm アマシャムファルマシアバイオテック)に供した。同じ緩衝液でカラムを洗浄後、結合したタンパク質を0から0.5Mの範囲のNaClの直線的勾配で溶出した。
【0056】
分画は、Z−Phe−Arg−MCA、Z−Arg−Arg−MCA、及びゼラチンチモグラフィーを用いて蛋白質分解活性を測定した。
【0057】
Z−Phe−Arg−MCAに対して高い活性を示すが,Z−Arg−Arg−MCAに対してはほとんど活性を示さない画分を回収して、50mM Tris−HCl(pH7.5、150mM NaCl含有)(緩衝液2)に対して透析後、Biomax−5K Ultrafree(ミリポア社製)を用いた限外ろ過により濃縮した。濃縮して回収された画分は、緩衝液2で平衡化されたSuperdex75pgゲル濾過カラム(1.6X100cm アマシャムファルマシアバイオテック)に添加し、同カラムは0.4ml/minの流速で、流出させた。
【0058】
Z−Phe−Arg−MCAに対して活性のある画分を回収し、10mMリン酸カリウム緩衝液(pH6.8)に対し透析した。透析した溶液は、同緩衝液で平衡化したBio−Scale CHT10−I ハイドロキシアパタイト(1.2X8.8cm バイオラッド)のカラムに添加した。非特異的結合タンパク質を洗浄除去し、結合タンパク質は、リン酸カリウム緩衝液(pH6.8)の10〜400mMの直線的勾配で溶出した。
N末のアミノ酸配列を確認したところ、L1であることが確認された。
【0059】
<カテプシンL様酵素活性測定>
酵素活性測定は、25℃で、分子内で蛍光が消失されたMCA(メチルクマリルアミド)基質を用い、100mM sodium acetate,pH6.0,100mM NaCl,2mM DTT,2mM EDTA and 0.01%Brij−35の緩衝液中で行った。基質溶液は、ジメチルスルホキシド中で20mMの濃度で調製された。加水分解反応は、同じ緩衝液で薄められた酵素を添加することにより開始し、酵素活性は、遊離した7−アミノ−4−メチルクマリン(AMC)を励起波長380nm、蛍光波長460nmで蛍光強度を測定した。
【0060】
<基質特異性の検定>
S2サブサイトの特異性は、種々のジペプチドMCA又はトリペプチドMCA基質を用いて、偽1次反応条件で行われた(ここで偽1次条件とは、初速度v0がkcat/Kmに直接比例する、推定Km値よりはるかに低い基質濃度を用いる条件を意味する)。結果は、図11に示される。
【0061】
基質として、次の蛍光ペプチド基質を用いた。Z−Phe−Arg−MCA,Z−Arg−Arg−MCA,Z−Pro−Arg−MCA,Z−Val−Val−Arg−MCA,Z−Leu−Leu−Arg−MCA,Z−Phe−Val−Arg−MCA,H−Arg−MCA及びZ−Arg−MCA。
【0062】
図11より、ホッコクアカエビ・カテプシンL1は、P2の位置(Schechter and Berger,1967 On the size of the active site in proteinases,I.Papain.Biochem.Biophys.Res.Commun.27,157−162の表記法)に非芳香属性の疎水性残基がある合成基質を高い特異性で切断することが分かる。この特異性パターンは、カテプシンK及びSに類似していおり、両者とも、この位置でPheよりLeuに特異性が高い。他方、カテプシンLは、逆の順序の特異性である。
【0063】
しかしながら、カテプシンK及びSとは異なり、ホッコクアカエビ・カテプシンL1は、P2の位置でPheよりもValを選択的に受容する。
【0064】
<阻害剤の影響>
酵素溶液は、E64(L−trans−epoxysuccinyl−leucyl−agmatine)、Z−Phe−Phe−CHN2、及びZ−Phe−Tyr(t−Bu)−CHN2、leupeptin、antipain、PMSF(phenylmethylsulfonyl fluoride)、及び1,10−phenanthrolineのいずれかの阻害剤と、緩衝液(100mM酢酸ナトリウム、2mM DTT、2mM EDTA、及び0,05%Triton X−100含有)中で前処理した後、蛍光基質Z−Phe−Arg−MCAにより残存酵素活性を測定した。酵素と基質の最終濃度は、それぞれ、1nM及び100μMで、残存酵素活性を上述の方法で測定した。
結果は表6に示す。
【0065】
【表6】
表6に示されるように、ホッコクアカエビ・カテプシンL1は、典型的なシステインプロテアーゼの阻害プロファイルを示す。ホッコクアカエビ・カテプシンL1は、システインプロテアーゼ阻害剤E64により0.1μMの濃度でも強く阻害される。L1は、システインプロテアーゼ及びセリンプロテアーゼの両者に対する阻害剤であるleupeptin,及びantipainにも強く阻害される。
【0067】
Z−Phe−Phe−CHN2は、カテプシンLの有効な阻害剤であるが、カテプシンB及びSもわずかに阻害することが知られている。また、Z−Phe−Tyr(t−Bu)−CHN2は、カテプシンLに特異的阻害剤である。
【0068】
しかしながら、Z−Phe−Phe−CHN2、及びZ−Phe−Tyr(t−Bu)−CHN2は、本酵素活性をほとんど阻害しなかった。また、セリンプロテアーゼ及びメタロプロテアーゼ群に特異的である阻害剤には阻害作用はなかった。
【0069】
以上から、本ホッコク・アカエビカテプシンL1は、従来公知のカテプシンL様蛋白質分解酵素とは、その特異性、阻害剤による阻害いずれも相違し、全く新しい酵素であると結論づけることができる。
【0070】
[実施例5]
ホッコクアカエビ・カテプシンL2の発現
ホッコクアカエビ・カテプシンL2(ホッコクアカエビ・システインプロテアーゼ:NsCys)をコードする遺伝子が、メタノール資化酵母であるピキア パストリス(Pichia pastoris)で、EasySelectTM Echo−AdaptedTM Pichia発現キット(Invitrogen)を用いて異種発現させられた。
【0071】
ホッコクアカエビ・カテプシンL2(NsCys)のシグナルペプチドを除く完全長の前駆体をコードする924塩基のcDNAがPCRで増幅され、キットのプロトコールに従って、キットに付属のpUniD/V5−His−TOPOベクターにサブクローンされた。得られたベクターは、ホッコクアカエビ・カテプシンL2(NsCys)のcDNAが酵母のα−接合因子分泌シグナルの下流におかれるようにピキア パストリス(P.pastoris)シャトルベクターであるpPICZα−EにCreリコンビナーゼを介するプラスミド融合により組み換えられた。
【0072】
融合されたプラスミドベクターが制限酵素PmeIで直鎖化された後、P.pastoris KM71H株(arg4 aox1::ARG4)をエレクトロポレーション法(GenePulser バイオラッド)により形質転換した。ホッコクアカエビ・カテプシンL2(NsCys)が複数コピー組み込まれた陽性の形質転換体は、酵母エキス、ペプトンエキスおよびソルビトールを含む培地(YPDS)中のゼオシン(zeocin)の濃度2000μg/mlまで上げることで選択された。単一コロニーの高生産性クローンを組換えタンパク質の大量生産のために選択し、濃縮培地からゲルろ過クロマトグラフィーによる1段階の精製のみで、ホッコクアカエビ・カテプシンL2(ホッコクアカエビ・システインプロテアーゼ:NsCys)の純粋な調製物を得た。
【0073】
ピキア パストリス(P.pastoris)クローンは、発現誘導前に1リットルのGCM(グリセロール複合培地)に接種され、通気条件下、30℃で、4日間前培養した。細胞は、室温で3000Xg、5分間遠心分離して、回収され、100mlのBMM(buffered Minimal Methanol medium)又はMM(Minimal Methanol medium)培地で発現が誘導された。メタノールは、培地からの蒸発損失を補うため、毎日最終濃度が0.75%になるように添加された。発現を確認するために、サンプルは毎日採取され、4℃で12000Xg、20分間遠心分離され、上清は、4−20%の勾配のポリアクリルアミドスラブゲルを用いたSDS−PAGEに供された。
【0074】
<組み換えタンパク質の精製>
無細胞培地上精は、YM−10膜(アミコン)を用いた限外ろ過により、4℃で約10mlまで濃縮された。濃縮物は、50mMのTri−HCl(150mMNaCl含有)に対して、透析された。透析されたものは、同じ緩衝液で平衡化されたSuperdex75pgカラム(1.6x100cm)を用いたゲルろ過クロマトグラフィーに供され、タンパク質は、流速0.3ml/minでFPLCシステムを用いて、溶出された。分画は、Z−Phe−Arg−MCAを用いて、酵素活性を測定し、最も高い活性を示す分画が更にSDS−PAGE及びザイモグラフィーで分析され、精製度の均一性が確認された。ゼラチンザイモグラフィーは、Heussen及びDowdleらの方法を若干修正して用いた。
【0075】
電気泳動は、4℃で、0.1%ゼラチン含有15%ポリアクリルアミドスラブゲルで行われた。電気泳動後、SDSは30分間2.5%Triton−X中で2回洗浄することで除去された。ゲルは、室温で3時間酵素反応溶液(100mM酢酸ナトリウム、pH5.5、100mM NaCl、2mM DTT、2mM EDTA及び0.01%Brij)中でインキュベートし、コマシーブリリアントブルーR250で染色され、10%酢酸で脱色された。
【0076】
結果を図12(文献1図5)に示す。
なお、図12Aの(レーン2)30KDaのタンパク質のN末端アミノ酸配列を決定したところ、塩基配列から演繹されたホッコクアカエビ・カテプシンL2(NsCys)成熟型のN末端アミノ酸配列と一致した。
【0077】
<タンパク質濃度の決定>
精製された組み換えホッコクアカエビ・カテプシンL2(NsCys)の濃度は、牛血清アルブミンを標準として用いて、Bradfordの方法により測定された。エビプロテアーゼの速度論研究のため、酵素のモル量がBarrett及びKirschkeの方法で、E−64で活性部位を滴定することにより測定された。
【0078】
<酵素活性>
実施例4と同様になされた。
【0079】
<活性及び安定性のpH及び温度依存性>
組換えホッコクアカエビ・カテプシンL2(NsCys)のpH活性プロファイルは、上述の偽1次条件下で、10μM基質濃度で測定された。
【0080】
次の緩衝液が用いられた。:pH3.0−6.0については100mMクエン酸ナトリウム緩衝液、pH6.0−8.0については100mMリン酸ナトリウム緩衝液、及びpH8.0−11.0については100mMホウ酸ナトリウム緩衝液。それぞれのpH緩衝液は更に、2mM DTT、2mM EDTA、及び300mMNaClを含む。
pH安定性を決定するために、酵素はこれらの緩衝液中で25℃、30分間インキュベートされた。残存活性が上述の蛍光基質を用いて測定された。
【0081】
結果は、図13に示される。哺乳類のカテプシンLは、アルカリ側では完全に不活性又は非常に活性が低いが、本ホッコクアカエビ・カテプシンL2(NsCys)は、pH8.5でさえも、約80%の活性を有している。
【0082】
ホッコクアカエビ・カテプシンL2(NsCys)がZ−Pro−Arg−MCAを加水分解する活性に対する温度の影響を測定するために、基質を含む緩衝液を各温度で、10分間プレインキュベートした後、酵素溶液を添加した。反応は5分間進行させられ、蛍光変化が上述のように記録された。熱安定性については、酵素溶液が30〜60℃で処理され、何度かの間隔で試料が採取され、直ちに氷上で冷却され、Z−Pro−Arg−MCAに対する残存活性を25℃で測定した。
【0083】
結果は、図14に示される。
<基質特異性の検定>
基質特異性は、実施例4と同様にして測定された。
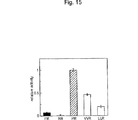
結果は、図15に示される。
【0084】
一般に、カテプシンL及びSは、P2部位に小さなβ分岐鎖のValより疎水性の大きな側鎖を有するPhe及びLeuのある基質をより選好する。ところがホッコクアカエビ・カテプシンL2(NsCys)は、ValとLeuの選好性が逆となっている。また、他の既知のカテプシンとは異なり、ProよりもPheに対する親和性が10倍も低い。哺乳類のカテプシンKもP2においてProを選好するが、P2残基として同様にLeuを受容しPheにも相当の親和性を有する点で異なる。
【0085】
<グルカゴンの分解>
1μMのグルカゴン試料が100mMNaCl、2mMDTT、及び0.01%Brij−35を含有する100mM酢酸ナトリウム緩衝液(pH6.0)中で12.5nMの組換えホッコクアカエビ・カテプシンL2(NsCys)により25℃、4時間分解された。そして、試料は15%酢酸で酸性化され、得られたペプチド断片は、すぐに逆相HPLC(ODS−120Aカラム(25X0.4cm トーソー))で分離された。カラムは、215nmの吸収がベースラインに達するまで、0.1%トリフルオロ酢酸含有水で洗浄され、溶出は0.1%トリフルオロ酢酸を含む95%アセトニトリルにより0−60%直線勾配を用いて流速1.0ml/minで行われた。
【0086】
215nmの吸収の各ピークに対応する溶出物が回収され、真空下で乾燥され、アプライドバイオシステム社タンパク質シークエンサーモデル476Aに供された。
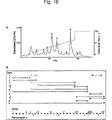
結果は図16に示される。
【0087】
グルカゴンには、Proは含まれないが、合成基質の分解結果と一致し、P2位置における残基の選好は、Val,Thr,Alaの順で、P2にLeuを持つ断片がないことは、Leuには非常に親和性が低いことを示している。
【0088】
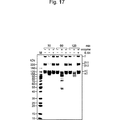
<コラーゲンの消化>
Proを多量に含むタイプIのコラーゲンの分解性を調べた。
豚皮膚の酸可溶性タイプIコラーゲンが、2.5μMの濃度となるように、100mM酢酸ナトリウム緩衝液(pH6.0、150mMNaCl、2mM DTT、及び2mM EDTAを含有)に希釈され、10μM E−64の存在下又は不存在下で、125nMのホッコクアカエビ・カテプシンL2(NsCys)を用いて処理された。
【0089】
試料を予め決められた間隔で回収し、直ちにSDS−PAGEサンプルバッファーに添加し、5分間沸騰させた。コラーゲンの分解は、4−20%の勾配ゲル(TEFCO)を用いて、コマシーブルー染色により確認した。
【0090】
結果は、図17に示される。
結果は、既知のシステインプロテアーゼと比較し、タイプIのコラーゲンの分解性が非常に高いことがわかった。
【0091】
[産業上の利用の可能性]
本発明により、コラーゲンを分解するホッコクアカエビ由来新規カテプシンL様酵素が提供される。本酵素はホッコクアカエビ肝膵臓より、あるいは本酵素をコードする遺伝子を導入し、形質転換した宿主細胞を培養することにより得ることができ、食品分野、化粧品分野、医薬分野など幅広い分野において有用に利用することができる。
【0092】
本件出願は、2002年6月17日に日本国特許庁になされた特願2002−175773号、及び2003年5月20日付けで本件発明者らにより米国特許庁になされた仮出願(60/471733)に基づく優先権を主張する出願であって、両出願の内容を引用により、取り込むものである。
【0093】
【配列表】
SEQUENCE LISTING
<110> Nichirei Corporation
<120> New collagen-degrading cathepsin L like cysteine proteinase derived from Northern shrimp(Pandalus eous), process for producing the same
<130> PH-1804-PCT
<150> JP 2002-175773
<151> 2002-06-17
<150> US 60/471,733
<151> 2003-05-20
<160> 12
<170> PatentIn Ver. 2.1
<210> 1
<211> 1246
<212> DNA
<213> Northern shrimp(Pandalus eous)
<400> 1
tgagtcagtt ctgctcaact ctgatacgat gaaggttctt cttttcctgt gtggtctggc 60
catagtcgcc gctagtgaat gggaaaactt caagttgacc catgctaaag tttacaccca 120
tggcaaggaa gatctttaca ggaggtccat ctttgagaac aaccagaagg ttgtcgagga 180
acacaatgaa cgattccgtc agggacttgt caccttcgac ctcaagatga acagattcgg 240
agatatgacg acagaggagt ttgtatccca gatgaccggg ctcaacaaag tagagaggac 300
cgttggtaag gtgttcgctc actaccctga agtagaaagg gctgacactg ttgactggag 360
agacaaagga gctgtgaccc cagttaagga tcagggtcag tgtggatcat gctgggcctt 420
ctctaccact ggagctctgg aaggagcaca tttcctgaaa cacggcgatt tagtcagtct 480
gtccgaacaa aatctggtcg attgctcaac tgagaacagt ggctgtaacg gcggtgtggt 540
ccaatgggcc tacgactaca tcaagtccaa caacggaatt gatactgaat cttcataccc 600
ctacgaagct caagatttaa cttgtcgatt cgacgctgca cacgttggtg ctaccgttac 660
tggatacgca gatatccctt atgctgatga agtgacccag gcctcagctg tccatgatga 720
tggtccagtc agcgtctgta ttgatgctgg acacaattcc ttccagttgt acagctcagg 780
tgtgtactac gagcctaact gcaatcctag ctctatcaac cacgctgtgt tgcccgtagg 840
atacggaaca gaggaaggca gtgactactg gctcatcaag aactcttggg gaactggctg 900
gggtctgagt ggatacatga agctcacaag gaacaagagc aatcattgtg gtgtcgccac 960
ccaatcttgt taccctaatg tctaagagct caatttaaga catggttttc cacttaaaca 1020
acggaggtaa tgtttaacca tttcaaaaac acctcaggaa agccttatgg ataaaagtaa 1080
tggatatctt caaacaattt tccactgaat tttcttgtgt gacgataaaa catctacttc 1140
cgccatttta agattacacc tgactcaaac tatacatatt aatgtgtgta gcattctagt 1200
agaaaataaa gaaagcatta caaaataaaa aaaaaaaaaa aaaaaa 1246
<210> 2
<211> 318
<212> PRT
<213> Northern shrimp(Pandalus eous)
<400> 2
Met Lys Val Leu Leu Phe Leu Cys Gly Leu Ala Ile Val Ala Ala Ser
1 5 10 15
Glu Trp Glu Asn Phe Lys Leu Thr His Ala Lys Val Tyr Thr His Gly
20 25 30
Lys Glu Asp Leu Tyr Arg Arg Ser Ile Phe Glu Asn Asn Gln Lys Val
35 40 45
Val Glu Glu His Asn Glu Arg Phe Arg Gln Gly Leu Val Thr Phe Asp
50 55 60
Leu Lys Met Asn Arg Phe Gly Asp Met Thr Thr Glu Glu Phe Val Ser
65 70 75 80
Gln Met Thr Gly Leu Asn Lys Val Glu Arg Thr Val Gly Lys Val Phe
85 90 95
Ala His Tyr Pro Glu Val Glu Arg Ala Asp Thr Val Asp Trp Arg Asp
100 105 110
Lys Gly Ala Val Thr Pro Val Lys Asp Gln Gly Gln Cys Gly Ser Cys
115 120 125
Trp Ala Phe Ser Thr Thr Gly Ala Leu Glu Gly Ala His Phe Leu Lys
130 135 140
His Gly Asp Leu Val Ser Leu Ser Glu Gln Asn Leu Val Asp Cys Ser
145 150 155 160
Thr Glu Asn Ser Gly Cys Asn Gly Gly Val Val Gln Trp Ala Tyr Asp
165 170 175
Tyr Ile Lys Ser Asn Asn Gly Ile Asp Thr Glu Ser Ser Tyr Pro Tyr
180 185 190
Glu Ala Gln Asp Leu Thr Cys Arg Phe Asp Ala Ala His Val Gly Ala
195 200 205
Thr Val Thr Gly Tyr Ala Asp Ile Pro Tyr Ala Asp Glu Val Thr Gln
210 215 220
Ala Ser Ala Val His Asp Asp Gly Pro Val Ser Val Cys Ile Asp Ala
225 230 235 240
Gly His Asn Ser Phe Gln Leu Tyr Ser Ser Gly Val Tyr Tyr Glu Pro
245 250 255
Asn Cys Asn Pro Ser Ser Ile Asn His Ala Val Leu Pro Val Gly Tyr
260 265 270
Gly Thr Glu Glu Gly Ser Asp Tyr Trp Leu Ile Lys Asn Ser Trp Gly
275 280 285
Thr Gly Trp Gly Leu Ser Gly Tyr Met Lys Leu Thr Arg Asn Lys Ser
290 295 300
Asn His Cys Gly Val Ala Thr Gln Ser Cys Tyr Pro Asn Val
305 310 315
<210> 3
<211> 1242
<212> DNA
<213> Northern shrimp(Pandalus eous)
<400> 3
cactttagca agatgaggtc tctgtttctt atccttctcg ggctggctgc ggtctccgcc 60
attggagaat gggaaaactt caagacgaag tttggcaaga agtatgccaa ctcagaagag 120
gagagtcaca gaatgtctgt tttcatggac aaactgaagt tcattcagga gcacaatgaa 180
cgatacgata agggagaagt cacttattgg ctgaaaatca acaacttctc cgatttgacc 240
cacgaagagg tcttggccac caagactgga atgaccagga gacgacaccc tctttccgta 300
ttgcccaaat ctgccccaac cacaccaatg gccgcagacg ttgactggag gaataagggg 360
gctgtcaccc ccgtcaagga tcagggacaa tgcggatcat gctgggcttt ctcagctgtc 420
gccgccttgg aaggagcgca cttcctgaag accggagatt tggtcagcct gtctgaacag 480
aatttggttg actgctcttc gtcttacggt aaccaaggat gtaatggtgg atggccatac 540
caagcttatc aatacatcat tgccaatcgt ggcattgaca ccgaatcgtc atacccttac 600
aaggcaattg atgacaattg ccgatatgat gccggaaaca tcggcgccac cgtcagcagt 660
tatgtcgaac cagcttcagg agatgagtcc gcacttcagc atgctgtcca gaatgaagga 720
cccgtcagcg tctgcattga tgctggtcaa tcatctttcg gtagttacgg aggaggtgtt 780
tactatgaac caaactgcga ttcctggtac gccaaccatg ccgtgacagc cgtcggctac 840
ggcaccgacg ccaacggagg agattactgg atcgtcaaga actcgtgggg tgcatggtgg 900
ggagagagtg gctacatcaa gatggccaga aacagggaca acaactgtgc cattgctacc 960
tatagtgtct accctgttgt ttaagatctt ttattgacac tcacaatgat tttctttcca 1020
tcatttatca ttggggaact tttaatattc atttggggtt ttcatttgat attttgtgta 1080
agtctcagtc aatcccatta gacatgtttt gttacggtgg attcttaagt caacctttga 1140
atcaaacact tttgtcaaat tacaatgaac acatccaaca gatgatgata catatgaaaa 1200
taaagataca acagataaaa aaaaaaaaaa aaaaaaaaaa aa 1242
<210> 4
<211> 323
<212> PRT
<213> Northern shrimp(Pandalus eous)
<400> 4
Met Arg Ser Leu Phe Leu Ile Leu Leu Gly Leu Ala Ala Val Ser Ala
1 5 10 15
Ile Gly Glu Trp Glu Asn Phe Lys Thr Lys Phe Gly Lys Lys Tyr Ala
20 25 30
Asn Ser Glu Glu Glu Ser His Arg Met Ser Val Phe Met Asp Lys Leu
35 40 45
Lys Phe Ile Gln Glu His Asn Glu Arg Tyr Asp Lys Gly Glu Val Thr
50 55 60
Tyr Trp Leu Lys Ile Asn Asn Phe Ser Asp Leu Thr His Glu Glu Val
65 70 75 80
Leu Ala Thr Lys Thr Gly Met Thr Arg Arg Arg His Pro Leu Ser Val
85 90 95
Leu Pro Lys Ser Ala Pro Thr Thr Pro Met Ala Ala Asp Val Asp Trp
100 105 110
Arg Asn Lys Gly Ala Val Thr Pro Val Lys Asp Gln Gly Gln Cys Gly
115 120 125
Ser Cys Trp Ala Phe Ser Ala Val Ala Ala Leu Glu Gly Ala His Phe
130 135 140
Leu Lys Thr Gly Asp Leu Val Ser Leu Ser Glu Gln Asn Leu Val Asp
145 150 155 160
Cys Ser Ser Ser Tyr Gly Asn Gln Gly Cys Asn Gly Gly Trp Pro Tyr
165 170 175
Gln Ala Tyr Gln Tyr Ile Ile Ala Asn Arg Gly Ile Asp Thr Glu Ser
180 185 190
Ser Tyr Pro Tyr Lys Ala Ile Asp Asp Asn Cys Arg Tyr Asp Ala Gly
195 200 205
Asn Ile Gly Ala Thr Val Ser Ser Tyr Val Glu Pro Ala Ser Gly Asp
210 215 220
Glu Ser Ala Leu Gln His Ala Val Gln Asn Glu Gly Pro Val Ser Val
225 230 235 240
Cys Ile Asp Ala Gly Gln Ser Ser Phe Gly Ser Tyr Gly Gly Gly Val
245 250 255
Tyr Tyr Glu Pro Asn Cys Asp Ser Trp Tyr Ala Asn His Ala Val Thr
260 265 270
Ala Val Gly Tyr Gly Thr Asp Ala Asn Gly Gly Asp Tyr Trp Ile Val
275 280 285
Lys Asn Ser Trp Gly Ala Trp Trp Gly Glu Ser Gly Tyr Ile Lys Met
290 295 300
Ala Arg Asn Arg Asp Asn Asn Cys Ala Ile Ala Thr Tyr Ser Val Tyr
305 310 315 320
Pro Val Val
<210> 5
<211> 20
<212> DNA
<213> Artificial Sequence
<400> 5
gcatcaatac agacgctgac 20
<210> 6
<211> 21
<212> DNA
<213> Artificial Sequence
<223> Primer
<400> 6
catcagcata agggatatct g 21
<210> 7
<211> 20
<212> DNA
<213> Artificial Sequence
<223> Primer
<400> 7
aacgtgtgca gcgtcgaatc 20
<210> 8
<211> 20
<212> DNA
<213> Artificial Sequence
<223> Primer
<400> 8
gtctcatctc cttcggttac 20
<210> 9
<211> 20
<212> DNA
<213> Artificial Sequence
<223> Primer
<400> 9
accttgaatg gtggcaccga 20
<210> 10
<211> 20
<212> DNA
<213> Artificial Sequence
<223> Primer
<400> 10
cgcacttgtc atcaacagca 20
<210> 11
<211> 28
<212> DNA
<213> Artificial Sequence
<223> Primer
<400> 11
tgagtcagtt ctgctcaact ctgatacg 28
<210> 12
<211> 24
<212> DNA
<213> Artificial Sequence
<223> Primer
<400> 12
cactttagca agatgaggtc tctg 24
【図面の簡単な説明】
図1は、ホッコクアカエビ・カテプシンL1の塩基配列及びアミノ酸配列
図2は、ホッコクアカエビ・カテプシンL2の塩基配列及びアミノ酸配列
図3は、ホッコクアカエビ・カテプシンL1のSDS−PAGE
Lane1:分子量マーカー、Lane2:ホッコクアカエビ・カテプシンL1(10μg)
図4は、ホッコクアカエビ・カテプシンL1によるコラーゲンの分解パターン
Lane1:分子量マーカー、Lane2:コラーゲン、Lane3:0時間反応、Lane4:25℃、30分間反応
図5は、ホッコクアカエビ・カテプシンL1の至適pHを示す図である。
図6は、ホッコクアカエビ・カテプシンL1の至適温度を示す図である。
図7は、ホッコクアカエビ・カテプシンL1の温度安定性を示す図である。
図8は、ホッコクアカエビ・カテプシンL1及びL2のアミノ酸配列と他の甲殻類のカテプシンL、ラットのカテプシンL及びパパインとの配列比較
位置番号はパパインの位置番号に基づき、同一の残基はドットで示され、マッチングが最大となるようにギャップが入れられている。3つのS−S結合を形成するシステインが灰色で、活性中心のCys,His Aspが白抜きで示されている。なお、ホッコクアカエビ・カテプシンL1及びL2は、それぞれ、Northern Shrimp 1及び2に相当する。
図9は、(A)パパインスーパーファミリーに属するカテプシン類の系統樹及び(B)アミノ酸配列間の相同性
系統樹は成熟型酵素配列の並列アラインメントに基づく近隣結合法により作成された。図8に現れる配列は太字で記載されている。分岐脇の数字はブートストラップ値(%)を表す。ホッコクアカエビのカテプシンL様システインプロテアーゼL1及びL2(それぞれ、NSL1及びNSL2と略す。)がパパイン、ラットカテプシン類B、H、K、S、及びL(それぞれ、RCB、RCH、RCK、RCL及びRCLと略す。)、アメリカンロブスター(Honmarus america)システインプロテアーゼ類1,2,及び3(それぞれ、LCP1,LCP2,及びLCP3と略す。)、ノルウエーロブスター(Nephros norvegicus)神経系及び胃カテプシンL(それぞれ、NCP1及びNCP2と略す。)並びにクルマエビ近縁種(Penaeus vannamel)カテプシンL1及びL2(それぞれ、PCP1及びPCP2と略す。)と比較される。
図10は、アクリルアミド中でのホッコクアカエビ・カテプシンL1のPAS(過よう素酸 シッフ)染色
第1レーン:分子量マーカー
第2レーン:ホッコクアカエビ・カテプシンL1(10μg)
第3レーン:トランスフェリン(10μg)
図11:(文献3図5)
「ホッコクアカエビ・カテプシンL1の基質特異性をジ又はトリペプチドの蛍光基質を用いた検定。Z−Xaa−Xaa−Arg−MCA(Xaaはアミノ酸1文字表記で表される異なるアミノ酸を意味する)で示されるジ又はトリペプチド蛍光MCA基質が用いられた。」
図中のFRはZ−Phe−Arg−MCA、RRはZ−Arg−Arg−MCA,PRはZ−Pro−Arg−MCA,VVRはZ−Val−Val−Arg−MCA,LLRはZ−Leu−Leu−Arg−MCA,そしてFVRはZ−Phe−Val−Arg−MCAをそれぞれ表す。
図12(文献1図5)酵母発現系により生産したホッコクアカエビ・カテプシンL2のSDS−PAGE(図12A)およびゼラチンチモグラフィー(図12B)を示す。
レーン1は、プロペプチドを含むホッコクアカエビ・カテプシンL2(NsCys)を、レーン2は、成熟型のホッコクアカエビ・カテプシンL2(NsCys)を示す。
図13:(文献1図6)ホッコクアカエビ・カテプシンL2の活性のpHプロファイル及びpH安定性
A:偽1次反応条件下で測定されたZ−Pro−Arg−MCA及びZ−Phe−Arg−MCAの加水分解についてホッコクアカエビ・カテプシンL(NsCys)のpH−依存活性の2次速度定数(Kcat/Km)が左及び右軸に示されている。
B:様々なpHの緩衝液中で30分間処理した後、pH6.0でZ−Pro−Arg−MCAに対する残存活性を測定した。各pHにおけるデータは、未処理試料に対する百分率で示された。
図14:ホッコクアカエビ・カテプシンL2の温度安定性
図15:ホッコクアカエビ・カテプシンL2の基質特異性
Z−Xaa−Xaa−Arg−MCA(Xaaはアミノ酸1文字表記で表わされ異なるアミノ酸を意味する)で示されるジ又はトリペプチド蛍光MCA基質が用いられた。
図15中に記載のFRはZ−Phe−Arg−MCA、RRはZ−Arg−Arg−MCA,PRはZ−Pro−Arg−MCA,VVRはZ−Val−Val−Arg−MCA,そしてLLRはZ−Leu−Leu−Arg−MCAをそれぞれ表す。
図16:ホッコクアカエビ・カテプシンL2によるグルカゴンの分解
A:グルカゴンをホッコクアカエビ・カテプシンL2で分解して生じた断片の逆相HPLCによる分離の結果を示すピーク(番号で表示)
B:逆相HPLCにより分離された断片(ピーク番号)のアミノ酸配列を決定した。
下にグルカゴンのアミノ酸配列が記載されている。各切断部位の感受性は、クロマトグラフィーのピークの高さから推定され、主要切断部位は太い矢印で、中程度の切断部位は、細い矢印で、あまり切断されない切断部位は破線で示され、ラットカテプシンLによる切断部位とあわせて示されている。
他のカテプシンLとの切断部位との違いがよく示された。
図17:タイプIコラーゲンのホッコクアカエビ・カテプシンL2による分解の結果を示すSDS−PAGE
Claims (13)
- 以下の性状を有する精製したホッコクアカエビ由来のカテプシンL様システインプロテアーゼ
(1)分子量は、約30KDa、
(2)至適PHは、約7〜8、
(3)至適温度は、約35℃、
(4)コラーゲン分解性を示す、及び
(5)カテプシンL様活性を示す。 - DTVDWRDKGAVTPVKDQGQで表されるN末端アミノ酸配列を有する請求項1記載のカテプシンL様蛋白質。
- 以下の(a)又は(b)の蛋白質
(a)配列番号2の位置番号106番以降のアミノ酸配列又は配列番号4の位置番号107番以降のアミノ酸配列を含む蛋白質
(b)アミノ酸配列(a)において1若しくは数個のアミノ酸が欠失、置換若しくは付加されたアミノ酸配列を含み、かつカテプシンL様システインプロテアーゼ酵素活性を有する蛋白質。 - 以下の(a)又は(b)である請求項3記載の蛋白質
(a)配列番号2の位置番号106番以降のアミノ酸配列又は配列番号4の位置番号107番以降のアミノ酸配列からなる蛋白質
(b)アミノ酸配列(a)において1若しくは数個のアミノ酸が欠失、置換若しくは付加されたアミノ酸配列からなり、かつカテプシンL様システインプロテアーゼ酵素活性を有する蛋白質。 - 請求項3又は4記載の蛋白質をコードするDNA。
- 以下の(a)又は(b)のDNA
(a)配列番号1の344塩基から982塩基を含むDNA又は配列番号3の331塩基から981塩基を含むDNA、
(b)(a)の相補的な塩基配列からなるDNAとストリンジェントな条件下でハイブリダイズし、かつカテプシンL様酵素活性を有する蛋白質をコードするDNA。 - 以下の(a)又は(b)である請求項6記載のDNA
(a)配列番号1の344塩基から982塩基からなるDNA又は配列番号3の331塩基から981塩基からなるDNA、
(b)(a)の相補的な塩基配列からなるDNAとストリンジェントな条件下でハイブリダイズし、かつカテプシンL様酵素活性を有する蛋白質をコードするDNA。 - 以下の(a)又は(b)のプレプロ型カテプシンL様システインプロテアーゼ蛋白質
(a)配列番号2又は4に記載のアミノ酸配列からなる蛋白質、
(b)アミノ酸配列(a)において1若しくは数個のアミノ酸が欠失、置換若しくは付加されたアミノ酸配列からなり、かつカテプシンL様酵素活性を有する蛋白質のプレプロ体。 - 請求項8記載のプレプロ型カテプシンL様システインプロテアーゼをコードするDNA。
- 以下の(a)又は(b)のDNA
(a)配列番号1又は3記載のDNA配列
(b)(a)の相補的な塩基配列からなるDNAとストリンジェントな条件下でハイブリダイズし、かつカテプシンL様酵素活性を有する蛋白質のプレプロ型をコードするDNA。 - 請求項5、6、9、及び10のいずれか1項に記載のDNAを含むベクター。
- 請求項11記載のベクターで形質転換されたカテプシンL様システインプロテアーゼ酵素を発現することができる宿主細胞。
- 請求項12記載の宿主細胞を用いてカテプシンL様蛋白質を発現させ、回収することを含むカテプシンL様システインプロテアーゼ蛋白質の製造方法。
Applications Claiming Priority (5)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2002175773 | 2002-06-17 | ||
| JP2002175773 | 2002-06-17 | ||
| US47173303P | 2003-05-20 | 2003-05-20 | |
| US60/471,733 | 2003-05-20 | ||
| PCT/JP2003/007661 WO2003106677A1 (ja) | 2002-06-17 | 2003-06-17 | ホッコクアカエビ由来の新規なカテプシンl様システインプロテアーゼ |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JPWO2003106677A1 JPWO2003106677A1 (ja) | 2005-10-13 |
| JP4355287B2 true JP4355287B2 (ja) | 2009-10-28 |
Family
ID=29738421
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2004513490A Expired - Lifetime JP4355287B2 (ja) | 2002-06-17 | 2003-06-17 | ホッコクアカエビ由来の新規なカテプシンl様システインプロテアーゼ |
Country Status (6)
| Country | Link |
|---|---|
| US (1) | US7595183B2 (ja) |
| JP (1) | JP4355287B2 (ja) |
| CN (1) | CN100408681C (ja) |
| AU (1) | AU2003241717A1 (ja) |
| CA (1) | CA2489736A1 (ja) |
| WO (1) | WO2003106677A1 (ja) |
Families Citing this family (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CN101886065B (zh) * | 2010-06-28 | 2012-05-02 | 浙江大学 | 鲤鱼背肌中组织蛋白酶l的分离纯化方法 |
| CN112852846B (zh) | 2021-02-05 | 2021-11-23 | 中国水产科学研究院淡水渔业研究中心 | 青虾Cathepsin L基因、其dsRNA及应用 |
| CN113846078B (zh) * | 2021-11-30 | 2022-02-11 | 中国水产科学研究院黄海水产研究所 | 一种南极磷虾组织蛋白酶及其异源表达方法 |
Family Cites Families (7)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US5736357A (en) * | 1994-10-27 | 1998-04-07 | Arris Pharmaceutical | Cathespin O protease |
| US6544767B1 (en) * | 1994-10-27 | 2003-04-08 | Axys Pharmaceuticals, Inc. | Cathespin O2 protease |
| US5776759A (en) * | 1996-09-26 | 1998-07-07 | Incyte Pharmaceuticals, Inc. | Two novel human cathepsin proteins |
| US6033893A (en) * | 1997-06-26 | 2000-03-07 | Incyte Pharmaceuticals, Inc. | Human cathepsin |
| US7045333B1 (en) * | 1998-01-16 | 2006-05-16 | Incyte Corporation | Human protease molecules |
| US6232454B1 (en) * | 1998-02-27 | 2001-05-15 | Incyte Genomics, Inc. | Human proteinase molecules |
| CN1295128A (zh) * | 2000-12-19 | 2001-05-16 | 中国科学院武汉病毒研究所 | 中国棉铃虫病毒组织蛋白酶基因 |
-
2003
- 2003-06-17 JP JP2004513490A patent/JP4355287B2/ja not_active Expired - Lifetime
- 2003-06-17 CN CNB038194902A patent/CN100408681C/zh not_active Expired - Fee Related
- 2003-06-17 CA CA002489736A patent/CA2489736A1/en not_active Abandoned
- 2003-06-17 AU AU2003241717A patent/AU2003241717A1/en not_active Abandoned
- 2003-06-17 WO PCT/JP2003/007661 patent/WO2003106677A1/ja not_active Ceased
-
2004
- 2004-05-20 US US10/849,162 patent/US7595183B2/en active Active
Also Published As
| Publication number | Publication date |
|---|---|
| US7595183B2 (en) | 2009-09-29 |
| AU2003241717A1 (en) | 2003-12-31 |
| WO2003106677A1 (ja) | 2003-12-24 |
| JPWO2003106677A1 (ja) | 2005-10-13 |
| US20040253707A1 (en) | 2004-12-16 |
| CN100408681C (zh) | 2008-08-06 |
| CA2489736A1 (en) | 2003-12-24 |
| CN1675358A (zh) | 2005-09-28 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| Klomklao et al. | Trypsin from the pyloric caeca of bluefish (Pomatomus saltatrix) | |
| Bibo-Verdugo et al. | A chymotrypsin from the digestive tract of California spiny lobster, Panulirus interruptus: Purification and biochemical characterization | |
| Capasso et al. | Cathepsin D from the liver of the Antarctic icefish Chionodraco hamatus exhibits unusual activity and stability at high temperatures | |
| Dolečková et al. | The functional expression and characterisation of a cysteine peptidase from the invasive stage of the neuropathogenic schistosome Trichobilharzia regenti | |
| Komai et al. | Todarepsin, a new cathepsin D from hepatopancreas of Japanese common squid (Todarodes pacificus) | |
| US7595183B2 (en) | Cathepsins L-like cysteine protease derived from northern shrimp (Pandalus eous) | |
| Umasuthan et al. | Heparin cofactor II (RbHCII) from rock bream (Oplegnathus fasciatus): molecular characterization, cloning and expression analysis | |
| Hauser et al. | Cloning, expression, and characterization of tomato (Lycopersicon esculentum) aminopeptidase P | |
| KR100980315B1 (ko) | 대장균시스템을 이용한 인위적 활성화가 가능한 카스파제전구체 대량생산 및 활성화 방법 | |
| Kim et al. | Cloning, expression analysis and enzymatic characterization of cathepsin S from olive flounder (Paralichthys olivaceus) | |
| US6592866B2 (en) | Non-selfdegrading endoprotease | |
| Miyaji et al. | Molecular cloning of a multidomain cysteine protease and protease inhibitor precursor gene from the tobacco hornworm (Manduca sexta) and functional expression of the cathepsin F-like cysteine protease domain | |
| Klomklao et al. | Trypsin from the Pyloric Ceca of Pectoral Rattail (Coryphaenoides pectoralis): purification and characterization | |
| Tan et al. | Occurrence of two distinct molecular species of cathepsin B in carp Cyprinus carpio | |
| Wu et al. | A unique group of inactive serine protease homologues from snake venom | |
| Je et al. | Molecular cloning, expression analysis and enzymatic characterization of cathepsin K from olive flounder (Paralichthys olivaceus) | |
| Rank et al. | [W206R]-procaspase 3: an inactivatable substrate for caspase 8 | |
| Ikuzawa et al. | Amphibian pepsinogens: purification and characterization of Xenopus pepsinogens, and molecular cloning of Xenopus and bullfrog pepsinogens | |
| Tsuji et al. | Identification and enzymatic characterization of clip domain serine protease in the digestive fluid of the sea hare, Aplysia kurodai | |
| KR100638318B1 (ko) | 피브린 용해 활성을 갖는 흰이빨참갯지렁이의 세린 계열프로테아제 및 이를 암호화하는 유전자 | |
| Zhao et al. | Analysis of substrate specificity and endopeptidyl activities of the cathepsin B-like proteinase from Helicoverpa armigera | |
| TW200400267A (en) | New cathepsin L-like cysteine protease derived from nothern shrimp | |
| KR100341508B1 (ko) | 브레비나제 | |
| JP3751086B2 (ja) | 新規システインプロテアーゼ | |
| JP3751144B2 (ja) | 新規システインプロテアーゼ |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20051209 |
|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20060411 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20090414 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20090615 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20090714 |
|
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20090731 |
|
| R150 | Certificate of patent or registration of utility model |
Ref document number: 4355287 Country of ref document: JP Free format text: JAPANESE INTERMEDIATE CODE: R150 Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20120807 Year of fee payment: 3 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130807 Year of fee payment: 4 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| EXPY | Cancellation because of completion of term |