JP5140848B2 - 没食子酸の製造法 - Google Patents
没食子酸の製造法 Download PDFInfo
- Publication number
- JP5140848B2 JP5140848B2 JP2007234463A JP2007234463A JP5140848B2 JP 5140848 B2 JP5140848 B2 JP 5140848B2 JP 2007234463 A JP2007234463 A JP 2007234463A JP 2007234463 A JP2007234463 A JP 2007234463A JP 5140848 B2 JP5140848 B2 JP 5140848B2
- Authority
- JP
- Japan
- Prior art keywords
- acid
- gallic acid
- gallic
- microorganism
- genus
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Active
Links
Landscapes
- Preparation Of Compounds By Using Micro-Organisms (AREA)
Description
などの安価な原料からプロトカテク酸を生産し、プロトカテク酸5位酸化活性を持つ蛋白質(以下、プロトカテク酸5位酸化酵素という)によりプロトカテク酸を没食子酸に変換することにより没食子酸を安価に製造する方法を提供することにある。
(A)配列番号16、26、30、32または34で表されるアミノ酸配列を有する蛋白質
(B)配列番号16、26、30、32または34で表されるアミノ酸配列において、1個以上のアミノ酸の置換、欠失、挿入または付加を含むアミノ酸配列からなり、かつプロトカテク酸の5位を酸化する酵素活性を有する蛋白質(配列番号30については385位のフェニルアラニンが置換または欠失した配列を含まない)。
在せしめ、該媒体中に没食子酸を生成、蓄積させ、該媒体から没食子酸を採取することを特徴とする前記(3)の没食子酸の製造法。
本発明で用いられるプロトカテク酸5位酸化酵素蛋白質としてはまた、配列番号16、26、30、32または34のアミノ酸配列において、1または数個のアミノ酸が欠失、置換または付加したアミノ酸配列からなり、かつプロトカテク酸5位酸化酵素活性を有する蛋白質をあげることができる。ただし、配列番号30のアミノ酸配列においては、385位のフェニルアラニンは保存されている必要があるので、385位のフェニルアラニンが欠失または置換した配列は含まない。
好ましくは、配列番号16、26、30、32および34で表される蛋白質が配列番号4で表されるPAO変異酵素よりも酵素活性が優れている原因は、配列番号4のアミノ酸配列と配列番号16、26、30、32および34のいずれかのアミノ酸配列の間の違いから由来しているので、これらアミノ酸配列の違いに基づいて配列番号16、26、30、32または34のアミノ酸配列において1または数個のアミノ酸が欠失、置換または付加したアミノ酸配列からなり、かつプロトカテク酸5位酸化酵素活性を有する蛋白質をあげることができる(配列番号30については385位のフェニルアラニンが置換または欠失した配列を含まない)。また、該蛋白質として、配列番号16、26、30、32および34のいずれかのアミノ酸配列と75%以上の相同性、好ましくは90%以上特に好ましくは95%以上の相同性を有するアミノ酸配列からなり、かつプロトカテク酸5位酸化酵素活性を有する蛋白質(配列番号30については385位のフェニルアラニンが置換または欠失した配列を含まない)をあげることができる。さらに、相互に37.8〜58.9%の相同性を有する配列番号16、26、30、32および34で表される蛋白質が配列
番号4で表されるPAO変異酵素よりもプロトカテク酸5位酸化酵素の比活性が2倍以上優れていることを本発明で見出したので、配列番号16、26、30、32および34で表される蛋白質のいずれかの蛋白質との相同性が75.0%以下であっても、37.8%以上であれば、PAO変異酵素よりもプロトカテク酸5位酸化酵素活性が2倍以上優れている酵素が容易に見出すことができる。したがって、本発明に関わるプロトカテク酸5位酸化酵素蛋白質としては、配列番号16、26、30、32および34で表されるアミノ酸配列と37.8〜75.0%の相同性を有し、配列番号4とは異なるアミノ酸配列からなり、かつプロトカテク酸の5位を酸化する酵素活性を有する蛋白質であってもよい。
Sci., USA, 79, 6409 (1982)、Gene, 34, 315 (1985)、Nucleic Acids Res., 13, 4431 (1985)、Proc.Natl. Acad. Sci., USA, 82, 488 (1985)等に記載の部位特異的変異導入法を用いて、例えば配列番号16、26、30、32および34で表されるアミノ酸配列からなる蛋白質をコードするDNAに部位特異的変異を導入することにより取得することができる。欠失、置換または付加される1または数個というアミノ酸の数はプロトカテク酸5位酸化酵素活性が維持される限り特に限定されないが、配列番号4のアミノ酸配列と配列番号16、26、30、32および34のいずれかのアミノ酸配列の間の違いの個数以内であることが望ましく、1〜20個が好ましく、1〜10個がより好ましく、1〜5個が特に好ましい。
できる。ノボスフィンゴビウム(Novosphingobium)属の微生物としては、例えばノボスフィンゴビウム・アロマティカボランス(Novosphingobium aromaticivorans)DSM 12444等をあげることができる。ラルストニア(Ralstonia)属の微生物としては、例えばラルストニア・メタリデュランス(Ralstonia metallidurans)CH34等をあげることができる。ただし、本発明に使用できる菌株は本菌株に限定されるものではなく、その目的を達成できる菌株であればすべて使用できる。
発明のDNAを発現する形質転換体は、上記DNA断片を適当な発現ベクターのプロモーターの下流に挿入することにより、組換え体DNAを作製し、該組換え体DNAを、該発現ベクターに適合した宿主細胞に導入することにより取得することができる。
好ましくは、テレフタル酸、フタル酸またはイソフタル酸またはパラヒドロキシ安息香酸の代謝能(テレフタル酸、フタル酸またはイソフタル酸またはパラヒドロキシ安息香酸からプロトカテク酸を生成する能力)を有する微生物を用いることができる。より好ましくは、テレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸の代謝能を有するエシェリヒア属(Escherichia)、シュードモナス(Pseudomonas)属、ロドコッカス(Rhodococcus)属、コリネバクテリウム(Corynebacterium)属、コマモナス(Comamonas)属、バチルス属(Bacillus)、マイコバクテリウム(Mycobacterium)属、ノボスフィンゴビウム(Novosphigobium)属またはバークホルデリア(Burkholderia)属の細菌をあげることができる。さらに好ましくは、テレフタル酸の代謝能を有するロドコッカス属細菌RHA1とコマモナス・テストステロニ(Comamonas testosteroni)E6をあげることができる。このような微生物にプロトカテク酸5位酸化酵素蛋白質を発現させることにより、テレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸からプロトカテク酸を経て没食子酸を製造することができる。すなわち、テレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸の代謝能を有し、かつ、プロトカテク酸5位酸化酵素蛋白質を発現する微生物を、それぞれ、テレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸を含有する培地中でこれらの化合物と反応させることにより、テレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸から生成したプロトカテク酸から没食子酸を得ることができる。
なお、テレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸からプロトカテク酸を生成するプロセスは別の微生物を用いて行ってもよい。すなわち、テレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸の代謝能を有する微生物によってテレフタル酸、フタル酸、イソフタル酸またはパラヒドロキシ安息香酸から生成したプロトカテク酸を、プロトカテク酸5位酸化酵素蛋白質を発現する微生物と反応させて没食子酸を得る方法も本発明の没食子酸の製造方法に含まれる。
・バイオテク社製)、pSE280(インビトロジェン社製)、pGEMEX-1(プロメガ社製)、pQE-8(キアゲン社製)、pET-3(ノバジェン社製)pBluescriptII SK(+)、pBluescript II KS(+)(ストラタジーン社製)、pSTV28(タカラバイオ社製)、pUC118(タカラバイオ社製)等を用いることができる。
なお、後述の実施例に示されるように、プロトカテク酸5位酸化酵素蛋白質を発現する微生物はパラヒドロキシ安息香酸からプロトカテク酸を生成する能力も有しているため、プロトカテク酸5位酸化酵素蛋白質を発現させた微生物をパラヒドロキシ安息香酸を含む培地で培養することにより、パラヒドロキシ安息香酸から没食子酸を製造することができる。
本発明で用いられるフタル酸の代謝能(フタル酸からプロトカテク酸を生成する能力)を有する微生物は、フタル酸ジオキシゲナーゼ、フタル酸ジオキシゲナーゼ・レダクターゼ、フタレート4,5-シス-ジヒドロキシジオール・ジヒドロゲナーゼ、4,5-ジヒドロキシフタレート脱炭酸酵素およびフタル酸トランスポーターの蛋白質を生産する能力を有する微生物を挙げることができる。
また本発明で用いられるイソフタル酸の代謝能(イソフタル酸からプロトカテク酸を生成する能力)を有する微生物は、イソフタル酸ジオキシゲナーゼ、イソフタル酸ジオキシゲ
ナーゼ・レダクターゼ、イソフタル酸1,2-ジヒドロジオールジヒドロゲナーゼおよびイソフタル酸トランスポーターの蛋白質を生産する能力を有する微生物を挙げることができる。これらの蛋白質を生産する能力を有する微生物は、これらの蛋白質をコードするDNAを組換えDNA技術法を用いて単離した後、上記のプロトカテク酸5位酸化酵素蛋白質を発現する形質転換体を取得する方法と同じ方法用いて取得することもできる。
。
(1)シュードモナス・アルギノサPAO株のパラヒドロキシ安息香酸水酸化酵素のアミノ酸配列と相同性を有する蛋白質のデータベース検索
シュードモナス・アルギノサPAO株のパラヒドロキシ安息香酸水酸化酵素は、パラヒドロキシ安息香酸を酸化してプロトカテク酸を生成する活性を保有するが、プロトカテク酸5位酸化活性を生成する活性は全く保有していないことが知られている〔Entsch, B, Palfey, B.A., Ballou, D. P. と Masey, V. J. Biol. Chem. 266, 17341-17349 (1991)〕。当該水酸化酵素と相同性を有するが、その相同性の値が大きくない蛋白質の中に、シュードモナス・アルギノサPAO株のパラヒドロキシ安息香酸水酸化酵素とは異なる活性、すなわちプロトカテク酸5位酸化活性を保有する蛋白質があるか調べてみることにした。具体的には、当該水酸化酵素75%以下の相同性を有する蛋白質をナショナル・センター・フォア・バイオテクノロジー・インフォメーション(以下、NCBIと略記する)のジェンバンク(GenBank;以下、GBと略記する)データベースから、配列番号2に示すシュードモナス・アルギノサPAO株のパラヒドロキシ安息香酸水酸化酵素のアミノ酸配列を問い合わせ配列とするBLAST相同性解析法を用いて検索を行った。その結果、表1に示す12種類の蛋白質が得られた。それぞれの蛋白質の略号とシュードモナス・アルギノサPAO
株のパラヒドロキシ安息香酸水酸化酵素との相同性%を表1に示した。
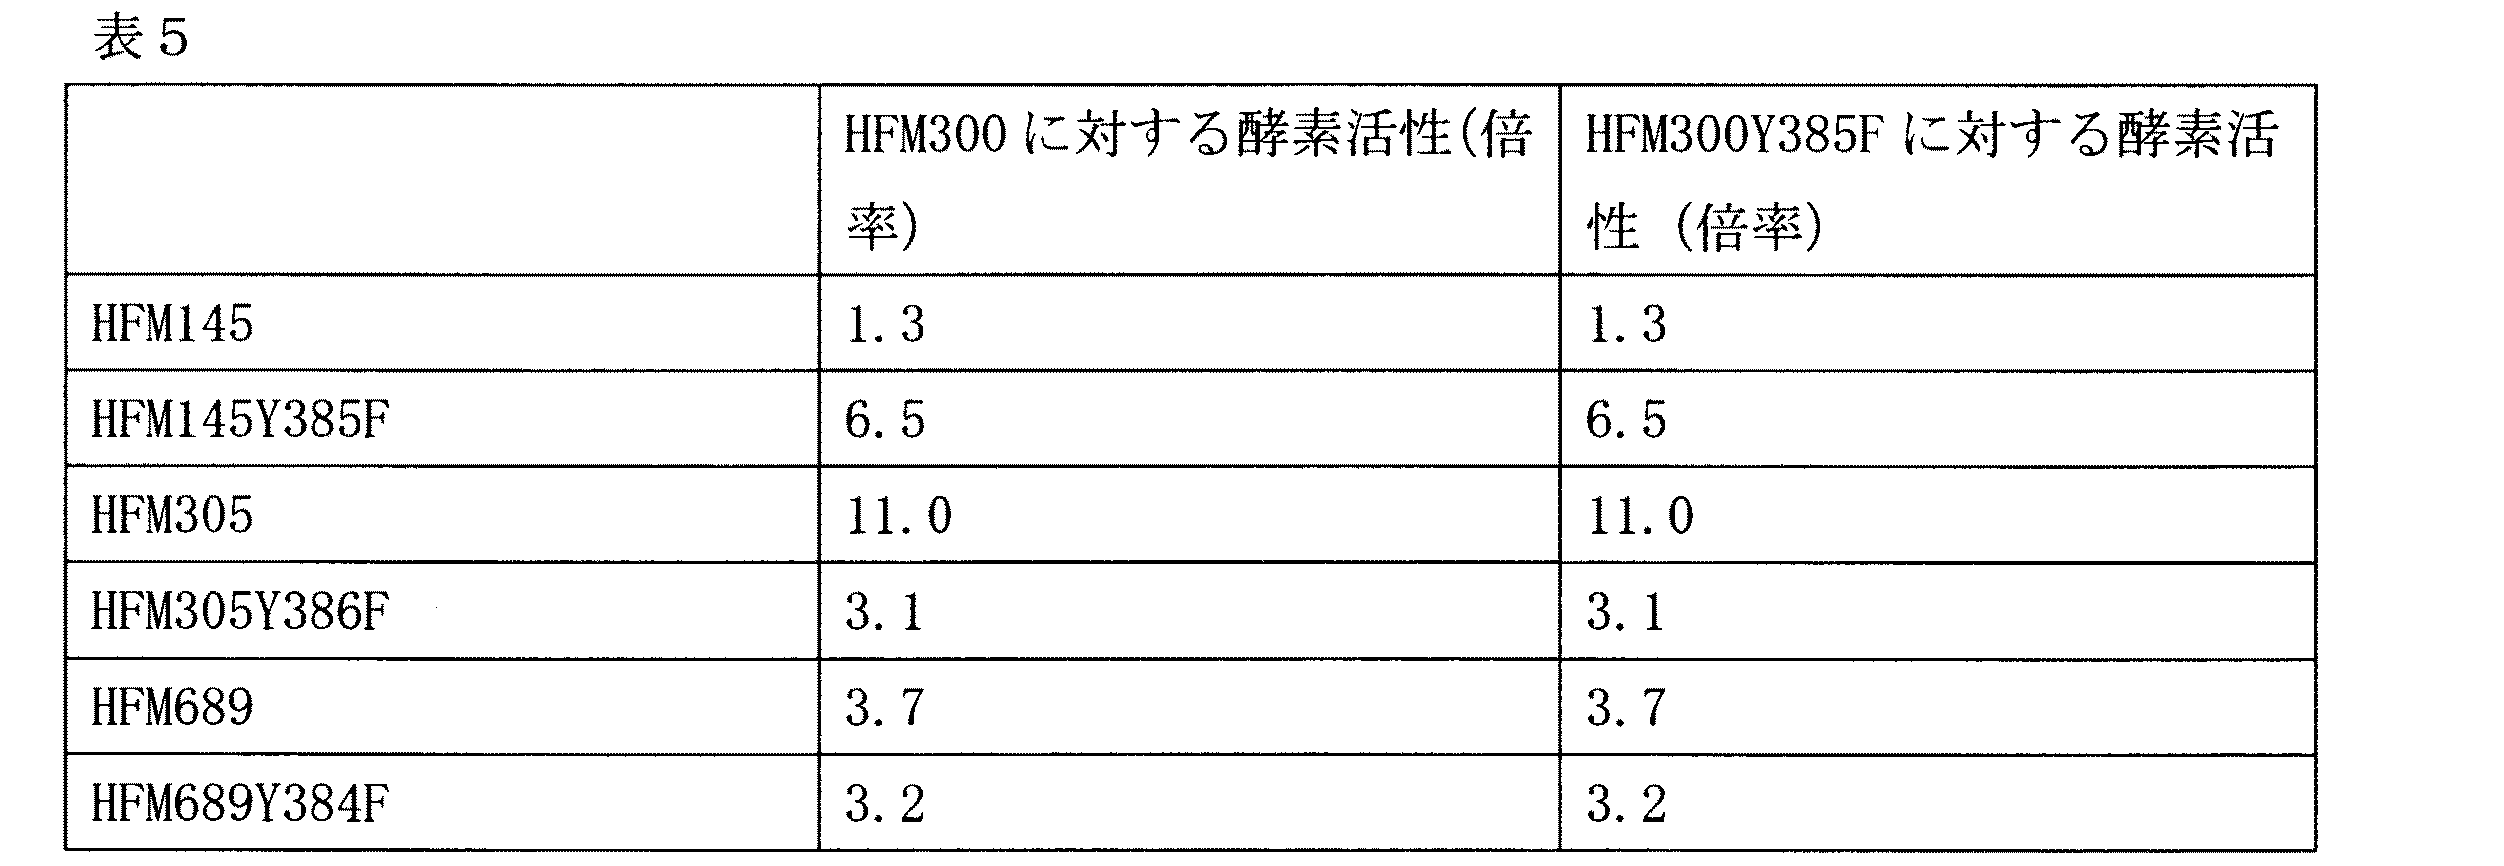
表1記載の12種類の蛋白質をコードするDNAをPCR法を用いてクローニングするために、各菌株の染色体DNAを下記のようにして調製または入手した。
モナス・パルストリスCGA009の染色体DNA(ATCC番号:BAA-98D)、菌株ブレビバクテリウム・リネンズBL2の染色体DNA(ATCC番号:9175D)、菌株ノボスフィンゴビウム・アロマティカボランスDSM 12444の染色体DNA(ATCC番号:700278D)、および菌株ラルストニア・メタリデュランスCH34の染色体DNA(ATCC番号:43123D)はATCCから入手した。
表2に示す12種類の遺伝子について、NCBIのGenBankデータベースより塩基配列データ(配列番号5、7、9、11、13、15、17、19、21、23、25および27)をインターネット経由で取得した。各塩基配列データのGBアクセッション番号は表2に示した。これらの塩基配列をもとに各遺伝子のDNAをPCR法を用いてクローニングするためのPCRプライマーを設計し、合成した。各PCRプライマーの塩基配列は表2に示した。
ロシュ・ダイアグノスティクス社から購入したエキスパンド・ハイ・フィデリティ・PCRシステム(Expand High Fidelity PCR System)およびロシュ・ダイアグノスティクス社から購入したジー・シー・リッチ・PCRシステム(GC Rich PCR System)を用いて、上記2で得た染色体DNAを鋳型にし、表2記載のDNAプライマーを用いて、添付の説明書に従って表2に示した遺伝子のDNAを増幅させた。なお、ジー・シー・リッチ・PCRシステムを用いたPCR反応はデメチルスルホオキシドと7-deasa-dGTPの存在下で実施した。
上記4で得られたHFM5遺伝子のDNA、HFM77遺伝子のDNA、HFM86遺伝子のDNA、HFM122遺伝子のDNA、HFM145遺伝子のDNA、HFM305遺伝子のDNA、HFM339遺伝子のDNA、HFM388遺伝子のDNA、HFM544遺伝子のDNA、HFM545遺伝子のDNA、HFM689遺伝子のDNAおよびHFM737遺伝子のDNAをそれぞれクローンテック社から購入したBD・イン−フュージョン・PCR・クローニング・キット(BD In-Fusion PCR Cloning Kit)を用いて、大腸菌T7プロモーターを利用した大腸菌用発現ベクターであるプラスミドpROX1(ロシュ・アプライド・サイエンス社から入手した;塩基配列は配列番号59に示した)の制限酵素部位Nco Iと制限酵素部位Sma I の間にクローニングし、それぞれの遺伝子を発現するプラスミドpROX_HFM5、pROX_HFM77、pROX_HFM86、pROX_HFM122、pROX_HFM145、pROX_HFM305、pROX_HFM339、pROX_HFM388、pROX_HFM544、pROX_HFM545、pROX_HFM689およびpROX_HFM737を得た。なお、これら発現プラスミドは、各野生型酵素のC末端にGly-Gly-Gly-Ser-His-His-His-His-His-His(配列番号82)の10アミノ酸のペプチドが付加された酵素蛋白質が発現する構造を有する。
上記5で述べたプラスミドpROX_HFM5、pROX_HFM77、pROX_HFM86、pROX_HFM122、pROX_HFM145、pROX_HFM305、pROX_HFM339、pROX_HFM388、pROX_HFM544、pROX_HFM545、pROX_HFM689およびpROX_HFM737をそれぞれ大腸菌K-12 BL21(DE3)株にカルシウムイオンを用いる形質転換法を用いて導入することにより、形質転換株BL21/ pROX_HFM5、BL21/ pROX_HFM77、BL21/ pROX_HFM86、BL21/ pROX_HFM122、BL21/ pROX_HFM145、BL21/ pROX_HFM305、BL21/pROX_HFM339、BL21/ pROX_HFM388、BL21/ pROX_HFM544、BL21/pROX_HFM545、BL21/ pROX_HFM689、およびBL21/ pROX_HFM737を造成した。なお、BL21(DE3)株は、大学共同利用機関法人情報・システム研究機構 国立遺伝学研究所 ナショナル・バイオ・リソース・プロジェクトより菌株番号ME9026として入手した。
上記12種類の形質転換体を5mlのLB培地で一晩培養した。プラスミドを維持するためにアンピシリンを最終濃度100ppmになるように加えた。新しいLB培地に1/100容量接種し、25℃で培養し対数増殖期にIPTG(isopropyl-1-thio-β-D-galactopyranoside)を終濃度1mMになるように添加し、3時間タンパク誘導を行った。タンパク誘導後、大腸菌を遠心によって集菌した。上清を捨て、500μlのHEPES緩衝液(50mM HEPES−NaOH(pH7.5)、10%グリセロール)に懸濁した。大腸菌懸濁液を超音波破砕機によって、細胞破砕を行った。大腸菌懸濁液は遠心分離(4℃、10分、20000×g)を行い、上清と沈殿物に分離し、上清を粗酵素液とした。粗酵素液のタンパク濃度をブラッドフォード法に基づいたバイオラッド(Bio-Rad)プロテイン・アッセイ(Bio-Rad Laboratories, CA, USA)を用いて計測し、1mg/mlになるようにHEPES緩衝液で希釈した。
、HFM544、HFM545、HFM689およびHFM737)はプロトカテク酸を基質にした場合、没食子酸を合成した。それぞれの粗酵素タンパク1mg当たりの1時間当たりの没食子酸合成はHFM5(151μM/時間/mg 粗酵素タンパク)、HFM86(30μM/時間/mg 粗酵素タンパク)、HFM145(249μM/時間/mg 粗酵素タンパク)、HFM305(359μM/時間/mg 粗酵素タンパク)、HFM339(20μM/時間/mg 粗酵素タンパク)、HFM388(11μM/時間/mg 粗酵素タンパク)、HFM544(35μM/時間/mg 粗酵素タンパク)、HFM545(8μM/時間/mg 粗酵素タンパク)、HFM689(350μM/時間/mg 粗酵素タンパク)およびHFM737(41μM/時間/mg 粗酵素タンパク)であった。HFM 145、HFM 305及びHFM689で特に没食子酸合成活性が強かった。
1.ポリシストロン型発現プラスミドの構築
上記HFM145酵素遺伝子、HFM305酵素遺伝子及びHFM689酵素遺伝子を大腸菌 JM109株、大腸菌 JM109(DE3)株や大腸菌 BL21(DE3)株で各遺伝子の転写・翻訳効率に依存しない効率よい発現を行うために、目的遺伝子の転写は疑似遺伝子に依存し、疑似遺伝子の翻訳効率を維持した状態で目的遺伝子も翻訳される発現系の構築を行った。より具体的にはT7プロモーター配列と疑似遺伝子及び目的遺伝子をHindIII部位とSphI部位を介してpUC19プラスミドDNA内に挿入するために、配列番号60〜63で表される4本の合成DNAを合成した。これら合成DNAをpUC19(タカラバイオ(株)社製)のHindIII部位とSphI部位の間に挿入し、発現ベクターpUTCH19を構築した。
シュードモナス・アルギノサPAO株のパラヒドロキシ安息香酸水酸化酵素遺伝子塩基配列データ(NC_002516)をNCBIのGenBankデータベースよりインターネット経由で取得した。この塩基配列をもとに各遺伝子のDNAをPCR法を用いてクローニングするための配列番号64で表されるフォワードPCRプライマーと配列番号65で表されるリバースPCRプライマーを設計し、合成した。シュードモナス・アルギノサPAO株の染色体DNA(ATCC番号:47085D-5)をATCCから入手し、これを鋳型として、2種のPCRプライマーとPrimeSTAR酵素(タカラ・バイオ社製)を用いたPCRによりパラヒドロキシ安息香酸水酸化酵素遺伝子のDNAを増幅させた後、Taq ポリメラーゼ(タカラ・バイオ社製)による3'末端にA残基を付与する処理を行った。ゲル電気泳動後により目的DNAを精製した後、pT7Blue-T ベクターに組み込むことにより、パラヒドロキシ安息香酸水酸化酵素蛋白質HFM300をコードするDNAを運ぶプラスミドpT7Blue_HFM300を造成した。pT7Blue_HFM300から制限酵素HindIIIと制限酵素 XbaIにより各酵素蛋白質をコードするDNAを切り出し、発現ベクターpUTCH19に組み込むことにより、プラスミドpUTCH_HFM300を造成した。
実施例1の結果から、酵素蛋白質HFM145、酵素蛋白質HFM305および酵素蛋白質HFM689を発現する形質転換株の培養抽出液を用いたときに、良好な没食子酸の生成が観察された。そこで、酵素蛋白質HFM145、酵素蛋白質HFM305および酵素蛋白質HFM689を効率よく発現する
プラスミドの構築を行った。上記プラスミドpROX_HFM145、pROX_HFM305およびpROX_HFM689から生産される酵素蛋白質HFM145、酵素蛋白質HFM305および酵素蛋白質HFM689は、いずれもC末端に10アミノ酸のペプチド(Gly-Gly-Gly-Ser-His-His-His-His-His-His(配列番号82))が付加されている。これらペプチドを除去した酵素蛋白質を発現するプラスミドを構築するために、まず表3に示すPCRプライマーを設計し、合成した。
これまでにプロトカテク酸から没食子酸を生成する活性を持つことが証明された酵素は、酵素蛋白質HFM300の385番目のチロシンをフェニールアラニンに置換した変異酵素蛋白質HFM300Y385Fのみであった。そこで、酵素蛋白質HFM145の385番目のチロシンをフェニールアランニンに置換した変異酵素蛋白質HFM145Y385F、酵素蛋白質HFM305の386番目のチロシンをフェニールアランニンに置換した変異酵素蛋白質HFM305Y386F、酵素蛋白質HFM689の384番目のチロシンをフェニールアランニンに置換した変異酵素蛋白質HFM689Y384Fを発現するプラスミドを
上記3に述べた方法と同様の方法により構築した。
プラスミドpUTCH_HFM300、pUTCH_HFM300Y385F、pUTCH_HFM145、pUTCH_HFM145Y385F、pUTCH_HFM305、pUTCH_HFM305Y386F、pUTCH_HFM689およびpUTCH_HFM689Y384Fをそれぞれ大腸菌JM109に形質転換法により導入し、組換え大腸菌JM109/pUTCH_HFM300、JM109/pUTCH_HFM300Y385F、JM109/pUTCH_HFM145、JM109/pUTCH_HFM145Y385F、JM109/pUTCH_HFM305、JM109/pUTCH_HFM305Y386F、JM109/pUTCH_HFM689FおよびJM109/pUTCH_HFM689Y384Fを造成した。これら形質転換体を、lacプロモーター誘導発現用培地であるオーバーナイト・エクスプレス・インスタントTB(Overnight Express Instant TB;Novagen社製;以下、OEI−TB培地と略す)を用いて、37℃で14時間培養した。集菌後、HEPES−グリシン緩衝液 0.5mlに懸濁した。この懸濁液に対して超音波破砕処理を加え、遠心した後、上清を回収して粗酵素液とした。続いて、粗酵素液の蛋白質濃度をブラッドフォード法により計測し、1mg/mlに調製した。
上記5で調製した粗酵素液の没食子酸合成酵素活性を次のようにして測定した。酵素反応は、プロトカテク酸(基質)500μM、FAD 10μM、FMN 10μM、NADH
2.5mM、NADP 2.5mM、粗酵素液68μgを含む100μlの反応液で30℃で1時間行った。反応後、LC−TOF型質量分析計(Waters社、LCT Premier XE)を用いて、生成した没食子酸の量を測定した。その結果、組換え大腸菌JM109/pUTCH_HFM300、JM109/pUTCH_HFM300Y385F、JM109/pUTCH_HFM145、JM109/pUTCH_HFM145Y385F、JM109/pUTCH_HFM305、JM109/pUTCH_HFM305Y386F、JM109/pUTCH_HFM689FおよびJM109/pUTCH_HFM689Y384Fにおいて、それぞれ1mg蛋白質あたり、133μM、133μM、172μM、865μM、1466μM、408μM、500μM、428μMの没食子酸が検出された。この活性測定結果より、各没食子酸合成酵素の活性比は下表のとおりである。
白質が生産されるように設計されているが、そのことを確認するために、上記粗酵素液内の没食子酸合成酵素蛋白質の量を下記のようにして測定した。上記で1mg/mlに調製した粗酵素タンパク液10μL(10μg)にβ−メルカプトエタノール(99.5%を0.25μl、10%ドデシル硫酸ナトリウム溶液を1.25μl、染色液1.25μl加えて、5分間煮沸処理を行った。冷却した泳動用サンプルをポリアクリルアミドゲル(ATTO
e-PAGEL E-T1020L)のウェルにアプライし、20mAで80分間泳動した。ゲルをクマシブリリアントブルー溶液(ATTO EzStainAqua)を用いてタンパク染色を行った。蒸留水で十分に脱色し、スキャナーを用いて画像を電子的に取り込んだ。ベクターコントロールと比較して、新しく発現したタンパクの中にHFM酵素タンパクのアミノ酸配列から予想される分子量(約44kD)のシグナルが見られた。電子的に取り込んだ画像を画像処理ソフトウェアNIH ImageJ(http://www.bioarts.co.jp/~ijjp/ij/)で解析したところ、各HFM酵素タンパクの発現量はサンプル間で違いは観察されなかった。
組換え大腸菌JM109/pUTCH_HFM300、JM109/pUTCH_HFM300Y385FおよびJM109/pUTCH_HFM305を、OEI−TB培地を用いて、25℃で一晩培養した後、集菌し、培地を捨てた。0.5mMパラヒドロキシ安息香酸と1mM IPTGを含む新しいLB培地(pH5.95)3mlを加え、25℃で20時間培養した。培養液を0.1ml取り、酢酸エチル1mlを加えた後、5分間攪拌した。HEPES−グリシン緩衝液0.15mlと5μlの2N HClを添加した後、5分間遠心分離を行った。上層800μlを採取し、乾燥させた。乾燥物をアセトニトリル10μlに溶解した、水190μlを加えた後、LC−TOF型質量分析計(Waters社、LCT Premier XE)を用いて、生成した没食子酸の量を測定した。その結果は、組換え大腸菌JM109/pUTCH_HFM300、JM109/pUTCH_HFM300Y385FおよびJM109/pUTCH_HFM305の没食子酸生成量はそれぞれ.4μM、2.5μM、42μMであった。したがって、JM109/pUTCH_HFM305の没食子酸生産性はJM109/pUTCH_HFM300の9.5倍、JM109/pUTCH_HFM300Y385Fの17.1倍であった。
ロドコッカス属(Rhodococcus sp.)RHA1株のテレフタル酸ジオキシゲナーゼ、テレフタル酸ジオキシゲナーゼ・レダクターゼ、テレフタル酸1,2-ジヒドロジオール ジヒドロゲナーゼ酵素遺伝子の塩基配列データ(NC_008268、NC_008269、NC_008270、NC_008271)をNCBIのGenBankデータベースよりインターネット経由で取得した。この塩基配列をもとに各遺伝子のDNAをPCR法を用いてクローニングするための配列番号80で表されるフォワードPCRプライマーおよび配列番号81で表されるリバースPCRプライマーを設計し、合成した。Rhodococcus sp. RHA1株の染色体DNAを鋳型として、2種のPCRプライマーとPrimeSTAR酵素(タカラ・バイオ社製)を用いたPCRによりテレフタル酸ジオキシゲナーゼ、テレフタル酸ジオキシゲナーゼ・レダクターゼ、テレフタル酸1,2-ジヒドロジオール ジヒドロゲナーゼ酵素遺伝子のDNAを増幅させた後、Taq ポリメラーゼ(タカラ・バイオ社製)による3'末端にA残基を付与する処理を行った。ゲル電気泳動後により目的DNAを精製した後、pT7Blue-T ベクターに組み込むことにより、テレフタル酸ジオキシゲナーゼ、テレフタル酸ジオキシゲナーゼ・レダクターゼ、テレフタル酸1,2-ジヒドロジオール ジヒドロゲナーゼをコードするDNAを運ぶプラスミドpT7Blue_TPACB1を造成した。pT7Blue_TPACB1から制限酵素HindIIIと制限酵素XbaIにより各酵素蛋白質をコードするDNAを切り出し、発現ベクターpUTCH19に組み込むことにより、プラスミドpUTCH_TPACB1を造成した。
なお、Rhodococcus sp. RHA1株は長岡科学技術大学の福田雅夫博士より分与を受け、同博
士から教授された方法に従って培養した。培養菌体から染色体DNAをディーエヌイージー・ティシュ・キット(キアゲン社製(DNeasy tissue kit;Qiagen)を用いて単離精製した。
pUTCH_TPACB1とpRTCH_HFM145_Y385F またはpUTCH_TPACB1とpRTCH_HFM305を用いて大腸菌JM109(DE3)を形質転換し、組換え大腸菌JM109(DE3)/(pUTCH_TPACB1, pRTCH_HFM145_Y385F)、およびJM109 (DE3)/(pUTCH_TPACB1, pRTCH_HFM305)を得た。
得られた組換え大腸菌JM109(DE3)/(pUTCH_TPACB1, pRTCH_HFM145_Y385F)、JM109 (DE3)/(pUTCH_TPACB1, pRTCH_HFM305)を5mlのOEI−TB培地を用いて37℃で14時間培養した。集菌後、LB培地(カナマイシン50ppm、アンピシリン100ppm、 IPTG 1mM、pH5.95)3mlに懸濁し、25℃で4時間培養した。菌懸濁液500μlを取り、1.5mlチューブに移した。テレフタル酸を終濃度0.5mMになるように添加した。0.5、24時間に菌懸濁液から100μlとり、1mlの酢酸エチル、150μLのHEPES緩衝液 5μlの2N HClを加え、激しく5分間懸濁し、遠心にかけた。二層に分かれた上層(酢酸エチル層)を800μlとり、新しい1.5mMチューブに移し、遠心乾燥機にかけた。乾固したサンプルを10μLのアセトニトリルで激しく懸濁し、190μLの水で希釈した。孔径0.2μmのフィルターで濾過し、LC−TOF型質量分析計(Waters社、LCT Premier XE)で解析した。
Claims (15)
- 以下の(A)または(B)に記載の蛋白質を発現する微生物を用いてプロトカテク酸から没食子酸を生成、蓄積させ、これを採取することを特徴とする没食子酸の製造方法。
(A)配列番号16、26、30、32または34で表されるアミノ酸配列を有する蛋白質
(B)配列番号16、26、30、32または34で表されるアミノ酸配列において、1または数個のアミノ酸の置換、欠失、挿入または付加を含むアミノ酸配列からなり、かつプロトカテク酸の5位を酸化する酵素活性を有する蛋白質(配列番号30については385位のフェニルアラニンが置換または欠失した配列を含まない)。 - 前記微生物の培養物または該培養物の処理物およびプロトカテク酸を水性媒体中に存在せしめ、該媒体中に没食子酸を生成、蓄積させ、該媒体から没食子酸を採取することを特徴とする請求項1に記載の没食子酸の製造法。
- 前記微生物がさらにテレフタル酸からプロトカテク酸を生成する能力を保有する微生物であり、該微生物をテレフタル酸を含有する培地中でテレフタル酸と反応させることにより、没食子酸を生成、蓄積させ、これを採取することを特徴とする請求項1に記載の没食子酸の製造方法。
- 前記微生物の培養物または該培養物の処理物およびテレフタル酸を水性媒体中に存在せしめ、該媒体中に没食子酸を生成、蓄積させ、該媒体から没食子酸を採取することを特徴とする請求項3に記載の没食子酸の製造法。
- 前記微生物がさらにフタル酸からプロトカテク酸を生成する能力を保有する微生物であり、該微生物をフタル酸を含有する培地中でフタル酸と反応させることにより、没食子酸を生成、蓄積させ、これを採取することを特徴とする請求項1に記載の没食子酸の製造方法。
- 前記微生物の培養物または該培養物の処理物およびフタル酸を水性媒体中に存在せしめ、該媒体中に没食子酸を生成、蓄積させ、該媒体から没食子酸を採取することを特徴とする請求項5に記載の没食子酸の製造法。
- 前記微生物がさらにイソフタル酸からプロトカテク酸を生成する能力を保有する微生物であり、該微生物をイソフタル酸を含有する培地中でイソフタル酸と反応させることにより、没食子酸を生成、蓄積させ、これを採取することを特徴とする請求項1に記載の没食子酸の製造方法。
- 前記微生物の培養物または該培養物の処理物およびイソフタル酸を水性媒体中に存在せしめ、該媒体中に没食子酸を生成、蓄積させ、該媒体から没食子酸を採取することを特徴とする請求項7に記載の没食子酸の製造法。
- 前記微生物がさらにパラヒドロキシ安息香酸からプロトカテク酸を生成する能力を保有する微生物であり、該微生物をパラヒドロキシ安息香酸を含有する培地中でパラヒドロキシ安息香酸と反応させることにより、没食子酸を生成、蓄積させ、これを採取することを特徴とする請求項1に記載の没食子酸の製造方法。
- 前記微生物の培養物または該培養物の処理物およびパラヒドロキシ安息香酸を水性媒体中に存在せしめ、該媒体中に没食子酸を生成、蓄積させ、該媒体から没食子酸を採取することを特徴とする請求項9に記載の没食子酸の製造法。
- テレフタル酸からプロトカテク酸を生成する能力が、テレフタル酸ジオキシゲナーゼ、テレフタル酸ジオキシゲナーゼ・レダクターゼ、テレフタル酸1,2-ジヒドロジオール ジヒドロゲナーゼおよびテレフタル酸トランスポーターの蛋白質をコードするDNAを形質転換法により導入して得られることを特徴とする、請求項3または4記載の没食子酸の製造方法。
- フタル酸からプロトカテク酸を生成する能力が、テレフタル酸ジオキシゲナーゼ、テレフタル酸ジオキシゲナーゼ・レダクターゼ、テレフタル酸1,2-ジヒドロジオール ジヒドロゲナーゼおよびテレフタル酸トランスポーターの蛋白質をコードするDNAを形質転換法により導入して得られることを特徴とする、請求項5または6記載の没食子酸の製造方法。
- イソフタル酸からプロトカテク酸を生成する能力が、イソフタル酸ジオキシゲナーゼ、イソフタル酸ジオキシゲナーゼ・レダクターゼ、イソフタル酸1,2-ジヒドロジオールジヒドロゲナーゼおよびイソフタル酸トランスポーターの蛋白質をコードするDNAを形質転換法により導入して得られることを特徴とする、請求項7または8記載の没食子酸の製造方法。
- 前記微生物が、前記(A)または(B)の蛋白質をコードするDNAが導入された微生物であることを特徴とする、請求項1から13のいずれか1項に記載の没食子酸の製造法。
- 微生物がエシェリヒア(Escherichia)属、ロドコッカス(Rhodococcus)属、アシネトバクター(Acinetobacter)属、ブラディリゾビウム(Bradyrhizobium)属、コリネバクテリウム(Corynebacterium)属、シュードモナス(Pseudomonas)属、ロドシュードモナス(Rhodopseudomonas)属、シノリゾビウム(Sinorhizobium)属、ブレビバクテリウム(Brevibacterium)属、ノボスフィンゴビウム(Novosphingobium)属またはラルストニア(Ralstonia)属に属する微生物であることを特徴とする、請求項1から14のいずれか1項に記載の製造法。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2007234463A JP5140848B2 (ja) | 2007-09-10 | 2007-09-10 | 没食子酸の製造法 |
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2007234463A JP5140848B2 (ja) | 2007-09-10 | 2007-09-10 | 没食子酸の製造法 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2009065839A JP2009065839A (ja) | 2009-04-02 |
| JP5140848B2 true JP5140848B2 (ja) | 2013-02-13 |
Family
ID=40602768
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2007234463A Active JP5140848B2 (ja) | 2007-09-10 | 2007-09-10 | 没食子酸の製造法 |
Country Status (1)
| Country | Link |
|---|---|
| JP (1) | JP5140848B2 (ja) |
Families Citing this family (8)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP5142268B2 (ja) * | 2008-03-10 | 2013-02-13 | 株式会社ジナリス | 改良型没食子酸合成酵素および没食子酸の製造法 |
| IN2014MN00978A (ja) | 2012-01-27 | 2015-04-24 | Genaris Inc | |
| EP3438245B1 (en) * | 2016-03-28 | 2023-01-11 | Research Institute Of Innovative Technology For The Earth | Transformant, and method for producing protocatechuic acid or salt thereof using same |
| CN108441527A (zh) * | 2018-03-20 | 2018-08-24 | 山西医科大学 | 一种利用生物酶转化制备鼠李素的方法 |
| US20220411831A1 (en) * | 2019-11-08 | 2022-12-29 | Kao Corporation | Polypeptide Having 4-Aminobenzoic Acid Hydroxylation Activity and Use Thereof |
| JP7475866B2 (ja) * | 2020-01-08 | 2024-04-30 | 花王株式会社 | 2,5-ピリジンジカルボン酸類生産能を有する形質転換細胞 |
| JP7531311B2 (ja) * | 2020-05-29 | 2024-08-09 | 花王株式会社 | 没食子酸合成酵素 |
| WO2023112933A1 (ja) | 2021-12-13 | 2023-06-22 | 花王株式会社 | 新規プロモーター |
Family Cites Families (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP3580926B2 (ja) * | 1995-12-21 | 2004-10-27 | 株式会社コスモ総合研究所 | 新規遺伝子、および該遺伝子を保有する形質転換体細胞 |
| US6472190B1 (en) * | 2000-03-16 | 2002-10-29 | Board Of Trustees Operating Michigan State Univerisity | Biocatalytic synthesis of galloid organics |
| CN100436589C (zh) * | 2001-06-22 | 2008-11-26 | 印度技术研究院 | 一种通过共培养制备五倍子酸的方法 |
-
2007
- 2007-09-10 JP JP2007234463A patent/JP5140848B2/ja active Active
Also Published As
| Publication number | Publication date |
|---|---|
| JP2009065839A (ja) | 2009-04-02 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| JP5142268B2 (ja) | 改良型没食子酸合成酵素および没食子酸の製造法 | |
| RU2710714C2 (ru) | Композиции и способы для биологического получения лактата из с1-соединений с применением трансформантов лактат дегидрогеназы | |
| JP2010207094A (ja) | プロトカテク酸の製造法 | |
| US20170298400A1 (en) | Method for producing psicose | |
| JP2009065839A (ja) | 没食子酸の製造法 | |
| US20140065697A1 (en) | Cells and methods for producing isobutyric acid | |
| CN109154008B (zh) | 3-羟基己二酸的制造方法 | |
| JP5532618B2 (ja) | 改良型ニトリルヒドラターゼ及びその製造方法 | |
| KR20100124332A (ko) | 글리옥살라아제 iii 활성을 갖는 폴리펩티드, 이를 코딩하는 폴리뉴클레오티드 및 이들의 용도 | |
| CN101679963A (zh) | 用于产生3-羧基黏康酸内酯的基因被破坏的菌株、重组质粒、转化体和方法 | |
| JP2017534268A (ja) | 有用産物の生産のための改変微生物および方法 | |
| KR101483012B1 (ko) | 재조합 대장균을 이용하여 3-히드록시프로피온산을 고수율로 생산하는 방법 | |
| JP2022530467A (ja) | 再生可能資源からの化学物質の生成 | |
| CN109196107B (zh) | α-氢化己二烯二酸的制造方法 | |
| KR102149044B1 (ko) | 2-히드록시 감마 부티로락톤 또는 2,4-디히드록시-부티레이트 의 제조 방법 | |
| JP7067706B2 (ja) | 形質転換微生物及びその利用 | |
| KR101541034B1 (ko) | D―갈락토네이트 고생산 대장균 균주 및 이의 용도 | |
| Ryu et al. | Isoeugenol monooxygenase and its putative regulatory gene are located in the eugenol metabolic gene cluster in Pseudomonas nitroreducens Jin1 | |
| EP1323827A2 (en) | Method for producing optically active 2-hydroxycycloalkanecarboxylic acid ester | |
| JP2008283917A (ja) | 乳酸の製造方法 | |
| CN116783281A (zh) | 用于制备酰胺化合物的方法和组合物 | |
| JP6527708B2 (ja) | 新規微生物、ならびにそれを用いる2,3−ジヒドロキシナフタレンの製造法 | |
| KR101533290B1 (ko) | D―갈락토네이트 고생산 대장균 균주 및 이의 용도 | |
| JP5866604B2 (ja) | 新規微生物、ならびにそれを用いる2,3−ジヒドロキシ安息香酸およびサリチル酸の製造法 | |
| JP5678356B2 (ja) | フェノール酸の製造法 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A711 | Notification of change in applicant |
Free format text: JAPANESE INTERMEDIATE CODE: A711 Effective date: 20090303 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A821 Effective date: 20090303 |
|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20100727 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20121002 |
|
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20121030 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20151130 Year of fee payment: 3 |
|
| R150 | Certificate of patent or registration of utility model |
Ref document number: 5140848 Country of ref document: JP Free format text: JAPANESE INTERMEDIATE CODE: R150 Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20151130 Year of fee payment: 3 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20221130 Year of fee payment: 10 |
|
| S303 | Written request for registration of pledge or change of pledge |
Free format text: JAPANESE INTERMEDIATE CODE: R316304 |
|
| R350 | Written notification of registration of transfer |
Free format text: JAPANESE INTERMEDIATE CODE: R350 |
|
| S111 | Request for change of ownership or part of ownership |
Free format text: JAPANESE INTERMEDIATE CODE: R313113 |
|
| R350 | Written notification of registration of transfer |
Free format text: JAPANESE INTERMEDIATE CODE: R350 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |