JP5286523B2 - 凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法 - Google Patents
凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法 Download PDFInfo
- Publication number
- JP5286523B2 JP5286523B2 JP2008506290A JP2008506290A JP5286523B2 JP 5286523 B2 JP5286523 B2 JP 5286523B2 JP 2008506290 A JP2008506290 A JP 2008506290A JP 2008506290 A JP2008506290 A JP 2008506290A JP 5286523 B2 JP5286523 B2 JP 5286523B2
- Authority
- JP
- Japan
- Prior art keywords
- proteasome
- subunit
- aggregate
- cell
- sod1
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Active
Links
Images






Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/48—Hydrolases (3) acting on peptide bonds (3.4)
- C12N9/50—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25)
- C12N9/52—Proteinases, e.g. Endopeptidases (3.4.21-3.4.25) derived from bacteria or Archaea
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P21/00—Drugs for disorders of the muscular or neuromuscular system
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P25/00—Drugs for disorders of the nervous system
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P25/00—Drugs for disorders of the nervous system
- A61P25/14—Drugs for disorders of the nervous system for treating abnormal movements, e.g. chorea, dyskinesia
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P25/00—Drugs for disorders of the nervous system
- A61P25/14—Drugs for disorders of the nervous system for treating abnormal movements, e.g. chorea, dyskinesia
- A61P25/16—Anti-Parkinson drugs
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P25/00—Drugs for disorders of the nervous system
- A61P25/28—Drugs for disorders of the nervous system for treating neurodegenerative disorders of the central nervous system, e.g. nootropic agents, cognition enhancers, drugs for treating Alzheimer's disease or other forms of dementia
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P43/00—Drugs for specific purposes, not provided for in groups A61P1/00-A61P41/00
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/85—Vectors or expression systems specially adapted for eukaryotic hosts for animal cells
Landscapes
- Health & Medical Sciences (AREA)
- Engineering & Computer Science (AREA)
- Life Sciences & Earth Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Organic Chemistry (AREA)
- Genetics & Genomics (AREA)
- Biomedical Technology (AREA)
- General Health & Medical Sciences (AREA)
- Zoology (AREA)
- Wood Science & Technology (AREA)
- Medicinal Chemistry (AREA)
- Neurology (AREA)
- Neurosurgery (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Veterinary Medicine (AREA)
- Public Health (AREA)
- Animal Behavior & Ethology (AREA)
- Pharmacology & Pharmacy (AREA)
- General Engineering & Computer Science (AREA)
- Biotechnology (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- General Chemical & Material Sciences (AREA)
- Biochemistry (AREA)
- Molecular Biology (AREA)
- Microbiology (AREA)
- Physics & Mathematics (AREA)
- Psychology (AREA)
- Biophysics (AREA)
- Plant Pathology (AREA)
- Psychiatry (AREA)
- Hospice & Palliative Care (AREA)
- Orthopedic Medicine & Surgery (AREA)
- Physical Education & Sports Medicine (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Peptides Or Proteins (AREA)
Description
真核細胞のユビキチン−プロテアソームシステムは蓄積し易い異常なタンパク質や上手く折り畳まれなかったタンパク質を分解する(非特許文献6)。これらの細胞内異常凝集体は、プロテアソームの機能低下が病態に関係していると考えられている神経変性疾患であるパーキンソン病や筋萎縮性側索硬化症(ALS)、ポリグルタミン病(ハンチントン病や数種の脊髄小脳変性症、球脊髄性筋萎縮症(SBMA))やアルツハイマー病の発病に関わっていると考えられている(非特許文献7〜11)。しかし、異常タンパク質の蓄積の原因ははっきりしていない。この共通問題を解決出来れば素晴らしい治療法の確立に繋がると思われる。
以上の背景の下、本発明は、変異スーパーオキシド・ジスムターゼ1や異常に伸長したポリグルタミン鎖を持つアンドロゲン受容体など、真核細胞内で凝集体を形成するタンパク質を分解するために有効な手段を提供すること目的とする。
本発明は主として以上の知見ないし成果に基づき、以下に示す凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法などを提供する。
[1]真核細胞用プロモーターに作動可能に連結された、古細菌のプロテアソームをコードする核酸配列を含有する、凝集体形成性タンパク質分解用の発現コンストラクト。
[2]前記核酸配列が古細菌のプロテアソームαサブユニット及び/又はβサブユニットをコードする、[1]に記載の発現コンストラクト。
[3]前記αサブユニットが、配列番号1に示すアミノ酸配列又は該アミノ酸配列と比較してプロテアソームαサブユニットの機能に実質的に影響しない部分でのみ相違するアミノ酸配列からなり、
前記βサブユニットが、配列番号3に示すアミノ酸配列又は該アミノ酸配列と比較してプロテアソームβサブユニットの機能に実質的に影響しない部分でのみ相違するアミノ酸配列からなる、[2]に記載の発現コンストラクト。
[4]前記核酸配列が配列番号2に示すDNA配列及び/又は配列番号4に示すDNA配列を含む、[1]に記載の発現コンストラクト。
[5]前記古細菌がメタノサルシナ属に属する古細菌である、[1]又は[2]に記載の発現コンストラクト。
[6]前記古細菌がメタノサルシナ・マゼイである、[1]又は[2]に記載の発現コンストラクト。
[7]前記真核細胞用プロモーターが哺乳動物用プロモーターである、[1]〜[6]のいずれかに記載の発現コンストラクト。
[8]前記凝集体形成性タンパク質が、変異スーパーオキシド・ジスムターゼ1、異常に伸長したポリグルタミン鎖を持つアンドロゲン受容体、α−シヌクレイン、及びタウからなる群より選択されるタンパク質である、[1]〜[7]のいずれかに記載の発現コンストラクト。
[9][1]〜[8]のいずれかに記載の前記発現コンストラクトを標的真核細胞に導入するステップを含む、標的真核細胞内で凝集体形成性タンパク質が凝集体を形成することを抑制する方法。
[10]古細菌のプロテアソームαサブユニット及びβサブユニットを標的真核細胞内で強制発現させるステップを含む、標的真核細胞内で凝集体形成性タンパク質が凝集体を形成することを抑制する方法。
[11]前記古細菌がメタノサルシナ属に属する古細菌である、[10]に記載の方法。
[12]前記古細菌がメタノサルシナ・マゼイである、[10]に記載の方法。
[13]前記標的真核細胞がヒト細胞である、[9]〜[12]のいずれかに記載の方法。
[14]前記標的真核細胞が、単離されたヒト細胞である、[9]〜[12]のいずれかに記載の方法。
[15]前記標的真核細胞が非ヒト哺乳動物細胞である、[9]〜[12]のいずれかに記載の方法。
[16]凝集体形成性タンパク質分解用の発現コンストラクト作製のための、又は標的真核細胞内で凝集体形成性タンパク質が凝集体を形成することを抑制するための、古細菌のプロテアソームの使用。
説明の便宜上、本明細書に使用される用語の一部についてその定義を以下にまとめる。
古細菌(Aarchaea)とは、真核生物、真正細菌と並び生物界を三分する生物群の一つであり、細胞膜の構成成分がエーテル型脂質であること、脂質骨格のグリセロールに対する炭化水素の結合位置がsn-2,3位であること、通常は細胞壁にペプチドグリカン層が見られないこと、抗生物質に対して特有の感受性を示すこと、ジフテリア毒素に感受性があること等で特徴付けられる。古細菌にはEuryarchaeota(ユリアーキオータ門(界))、Crenarchaeota(クレンアーキオータ門(界))、Korarchaeota(コルアーキオータ門(界))、及びNanoarchaeota(ナノアーキオータ門(界))があり、代表的な古細菌としてメタン細菌(Methanothermus fervidus、Methanococcus voltae、Methanobacterum formicicum、Methanococcus jannaschii、Methanosarucina mazeiなど)、高度好塩菌(Halobacterium salinarumなど)、好熱菌(Thermoplasma acidophilum)、硫黄細菌などが知られている。尚、古細菌の分類、同定方法などについての以下の成書、(1)Archaea, A laboratory manual, edited by F. T. Robb, A. R. Place, K. R. Sowers, H. J. Schreier, S. DasSarma and E. M. Fleischmann, Cold Spring Harbor Laboratory Press, New York (1995)、(2)Superbugs, Microorganisms in Extreme Environments edited by K. Horikoshi and W. D. Grant, Springer-Verlag, Tokyo (1991)、(3)Extremophiles, Microbial Life in Extreme Environments edited by K. Horikoshi and W. D. Grant, Wiley-Liss, Inc., New York (1991)等が参考になる。
尚、特に言及しない限り、本明細書において単に「核酸」と記載した場合には、単離された状態の核酸を意味する。
本発明の第1の局面は凝集体形成性タンパク質分解用の発現コンストラクトに関する。本発明において「凝集体形成性タンパク質」とは、正常な状態では単独で存在しているが何らかの原因で凝集体を形成する性質を獲得し、又は凝集体を形成するように方向付けられたタンパク質であって、その凝集体が細胞毒性を発揮するものをいう。尚、ここでの「単独で存在」とは、凝集体を形成していないという意味であり、通常の状態で他の分子と複合体を形成するタンパク質の場合はこのような複合体を形成した状態であっても「単独で存在」に該当する。また、「細胞毒性」とは、細胞が正常な状態を維持することに対する負の性質ないし作用をいい、典型的には細胞機能の低下又は細胞死を惹起する性質ないし作用が該当する。
尚、古細菌は例えば、独立行政法人理化学研究所バイオリソースセンター、独立行政法人 製品評価技術基盤機構、ATCC (American Type Culture Collection)、DSMZ (German Collection of Microorganisms and Cell Cultures)などより入手可能である。
二つの配列の比較及び同一性の決定は数学的アルゴリズムを用いて実現可能である。配列の比較に利用可能な数学的アルゴリズムの具体例としては、KarlinおよびAltschul (1990) Proc. Natl. Acad. Sci. USA 87:2264-68に記載され、KarlinおよびAltschul (1993) Proc. Natl. Acad. Sci. USA 90:5873-77において改変されたアルゴリズムがあるが、これに限定されることはない。このようなアルゴリズムは、Altschulら (1990) J. Mol. Biol. 215:403-10に記載のNBLASTプログラムおよびXBLASTプログラム(バージョン2.0)に組み込まれている。あるアミノ酸配列に相同的なアミノ酸配列を得るには例えば、XBLASTプログラムでscore = 50、wordlength = 3としてBLASTポリペプチド検索を行えばよい。比較のためのギャップアライメントを得るためには、Altschulら (1997) Amino Acids Research 25(17):3389-3402に記載のGapped BLASTが利用可能である。BLASTおよびGapped BLASTを利用する場合は、対応するプログラム(例えばXBLASTおよびNBLAST)のデフォルトパラメータを使用することができる。詳しくはhttp://www.ncbi.nlm.nih.govを参照されたい。配列の比較に利用可能な他の数学的アルゴリズムの例としては、MyersおよびMiller (1988) Comput Appl Biosci. 4:11-17に記載のアルゴリズムがある。このようなアルゴリズムは、例えばGENESTREAMネットワークサーバー(IGH Montpellier、フランス)またはISRECサーバーで利用可能なALIGNプログラムに組み込まれている。アミノ酸配列の比較にALIGNプログラムを利用する場合は例えば、PAM120残基質量表を使用し、ギャップ長ペナルティ=12、ギャップペナルティ=4とすることができる。
二つのアミノ酸配列の同一性を、GCGソフトウェアパッケージのGAPプログラムを用いて、Blossom 62マトリックスまたはPAM250マトリックスを使用し、ギャップ加重=12、10、8、6、又は4、ギャップ長加重=2、3、又は4として決定することができる。
本発明の第2の局面は、古細菌のプロテアソームを利用して標的細胞内で凝集体形成性タンパク質が凝集体を形成することを抑制する方法(以下、「本発明の抑制法」ともいう)に関する。尚、本発明において用語「抑制」は用語「阻止」と互換的に使用される。
単離された標的細胞は生物個体より調製することができる。一方、独立行政法人理化学研究所バイオリソースセンター、独立行政法人 製品評価技術基盤機構、ATCC (American Type Culture Collection)、DSMZ(German Collection of Microorganisms and Cell Cultures)などより入手した細胞を、単離された標的細胞として使用することもできる。
本発明の発現コンストラクト又は本発明の抑制法は、特定の真核細胞内において古細菌のプロテアソームを強制発現させた場合の挙動を調べる目的でも使用され得る。また、トランスジェニック非ヒト哺乳動物を作製する目的で本発明の発現コンストラクトなどを使用することもできる。例えば、本発明の発現コンストラクト又は本発明の抑制法によって古細菌のプロテアソームをコードする核酸が導入された受精卵母細胞又は胚性幹細胞を作製し、これからトランスジェニック非ヒト哺乳動物を発生させることができる。本発明の非トランスジェニック動物は、古細菌のプロテアソームが哺乳動物に与える影響ないし効果を個体レベルで検討することを可能にする点で有用である。トランスジェニック非ヒト哺乳動物は、受精卵の前核に直接DNAの注入を行うマイクロインジェクション法、レトロウイルスベクターを利用する方法、ES細胞を利用する方法などを用いて作製することができる。以下、トランスジェニック非ヒト哺乳動物の作製方法の一例として、マイクロインジェクション法を利用した方法を説明する。
マイクロインジェクション法では、まず交尾が確認された雌マウスの卵管より受精卵を採取し、そして培養した後にその前核に発現コンストラクトの注入を行う。注入操作を終了した受精卵を偽妊娠マウスの卵管に移植し、移植後のマウスを所定期間飼育して仔マウス(F0)を得る。仔マウスの染色体に導入遺伝子が適切に組込まれていることを確認するために、仔マウスの尾などからDNAを抽出し、導入遺伝子に特異的なプライマーを用いたPCR法や導入遺伝子に特異的なプローブを用いたドットハイブリダイゼーション法等を行う。本明細書における「トランスジェニック非ヒト哺乳動物」の種は特に限定されないが、好ましくはマウス、ラットなどの齧歯類である。
(1)発現ベクターの作成:Methanosarcina mazei(Mm)プロテアソームサブユニットα、β、Δ(2-13)α、変異β(Thr1Cys)
ATCCにて購入したMm(ATCC BAA-159D)のゲノムを鋳型としてPCR法にてプロテアソームサブユニットα(Gene Bank GeneID:1480962、Gene Bank Accession No.NP_634644(アミノ酸配列、配列番号1)、Gene Bank Accession No. NC_003901(塩基配列、配列番号2)を、αF:5’- GCGGGTACCCCACCATGCAGATGGCACCACAGATG(配列番号5)と、αR:5’- CGCCTCGAGTTATTCTTTGTTCTCATTTCCTTTGTG(配列番号6)のプライマーを用いて増幅し、Δ(2-13)α(Δα)はΔαF; 5’- GCGGGTACCCCACCATGACGGTTTTCAGCCCTGACGG(配列番号7)と先述のαRを用いて増幅した。PCR産物はpcDNA3.1(+) (Invitrogen)ベクターのKpnIとXhoIサイトに挿入した。サブユニットβ(Gene Bank GeneID:1479036、Gene Bank Accession No.NP_632718(アミノ酸配列、配列番号3)、Gene Bank Accession No. NC_003901(塩基配列、配列番号4)はβF:5’- GCCTCTAGACCACCATGGATAATGACAAATATTTAAAG(配列番号8)とβR:5’- GCGACCGGTGTTTCCTAAAGCTCTTCTG(配列番号9)を用いて増幅し、pcDNA3.1(+)MycHisベクター(Invitrogen)のXbaIとAgeIサイトに挿入し、C末に6×ヒスチジンタグが連結されるようにした。変異βサブユニット:mβ1(Thr1Cys)はSite-directed Mutagenesis Kit (Stratagene)を用い付属マニュアルに沿って作製した。pcDNA3.1/MycHis-SOD1とpCMV-Tag4-SOD1ベクター(野生型とG93A、G85R、H46R、G37R)(参考文献16)及びpEGFP-N1-SOD1(野生型とG93A)ベクター、pCR3.1-AR24QとpCR3.1-AR97Qベクター、pcDNA3.1(+)/MycHis-α-synuclein(野生型とA53T、A30P)は以前作製したものを使用した(参考文献16、17、18)。6種類のアイソフォームのtauタンパク質については、Dr. Michel Goedertより供与されたpRK172ベクターからPCR法を用いて増幅し、pcDNA 3.1(+) (Invitrogen)ベクターのKpnIとXhoIサイトに挿入したものを使用した。
Neuro2a細胞とHuman embryonic kidney 293 (HEK293)細胞は、10%の牛胎仔血清含有のDulbecco’s modified Eagle’s medium (DMEM)を用いて培養した。MTS assayにおけるトランスフェクションにはLipofectamine 2000(Invitrogen)を用い、その他の実験におけるトランスフェクションにはEffectene Transfection Reagent (Qiagen)を用いた。使用した抗体を以下に列挙する。
抗SOD1抗体(SOD100、Stressgen bioreagents)、抗His抗体(Penta-His、Qiagen)、抗α-チューブリン抗体(clone B-5-1-1、Sigma)、抗20Sプロテアソームβサブユニット抗体(Methanosarcina thermophila由来、Calbiochem)、抗20Sプロテアソームαサブユニット抗体(Methanosarcina thermophila由来、Calbiochem)、抗AR抗体 (N-20、Santa Cruz Biotechnology)、抗α-シヌクレイン抗体(LB509、Zymed)、抗tau抗体(Mouse Tau-1、Chemicon International)。
直径10cmの培養皿で培養した細胞を1mlの0.01M Tris-EDTA, pH 7.5で回収し、2回の解凍−溶解サイクルで細胞を破壊し、4℃、15分間、15000gで遠心後の上清を10?40%の直線的濃度勾配を持つ36mlのグリセオールの最上部に注入し、Beckman SW28ローターにて80000gで22時間遠心分離した。遠心後1mlずつLiquid layer injector fractionator (LLIF) (Advantech, model number CHD255AA)を用いて最上部から37分画に分離した。各分画より200μlずつをアセトンにて沈殿させ、沈殿物をそれぞれ50μlのサンプルバッファーにて溶解し、SDS-PAGE及びウエスタンブロットに使用した。免疫染色によるバンドに関し、ImageGauge software(フジフィルム)を用いて定量解析を行った。
10cmの培養皿で培養したHEK293細胞にMmプロテアソームサブユニットα、αβ、Δαβ、αmβ1をトランスフェクションし、1mlのPBSバッファーで回収した後に2回の凍結−融解サイクルにて細胞を破壊し、3000gで遠心し上清を回収した。上清と200μlのNi-NTAアガロースを混ぜ、4mlの10mMイミダゾール/PBSバッファーで4回洗浄した。その後、2mlの250mMイミダゾール/PBSバッファーにて溶出した。
Ni-NTA法にて生成したサンプル500μlに10mMのLLVY-AMC (Sigma)を加えて37℃で12時間インキュベートし、マルチプレートリーダー(PowerscanHT, 大日本製薬)にてキモトリプシン様活性を測定した。測定は3回行いone-way ANOVAを用いて解析した。
ガラスカバースリップ上で培養したHEK293細胞にpEGFP-N1-SOD1とMmプロテアソームα、βサブユニットをトランスフェクションした。48時間後細胞を固定し、ブロッキングの後に抗His抗体と4℃にて一晩インキュベートした。洗浄後、二次抗体(Alexa-546-抗マウス抗体、Molecular Probes, Inc.)と反応させ、オリンパスBX51を用いて撮影した。
6cmの培養皿で培養したNeuro2a細胞に1μgのpcDNA3.1/MycHis-SOD1とmock(0.6μg)あるいはMmプロテアソームαmβ1(各0.3μg)、Mmプロテアソームαβ(各0.3μg)をトランスフェクションした。24時間後に50μg/mlになる様にサイクロヘキシミドを加え、指定時間に細胞をそれぞれ回収しSDS-PAGE及びウエスタンブロットに使用した。
6cmの培養皿で培養したNeuro2a細胞に1μgのpCMV-Tag4-SOD1G93Aとmock(0.6μg)あるいはMmプロテアソームαmβ1(各0.3μg)、Mmプロテアソームαβ(各0.3μg)をトランスフェクションした。24時間後に(35S)Cysで60分間ラベルし、指定時間に回収した。抗FLAG抗体(M2, Sigma)にて免疫沈降を行った後、SDS-PAGEを行い、Typhoon 9410(Genaral Electric Company)にて放射能を測定した。
コラーゲンコート96ウェルプレートでHEK293細胞を培養し、pcDNA3.1/MycHis-SOD1(野生型やG93A, G85r)とmockあるいはMmプロテアソームαmβ1、Mmプロテアソームαβをそれぞれ12ウェルずつトランスフェクションした。3-(4,5-dimethylthiazol-2-yl)-5-(3-carboxymethoxyphenyl)-2-(4-sulfophenyl)-2H-tetrazolium(MTS)による細胞の生存能力測定はトランスフェクションの48時間後に行った。490nmの吸光度はマルチプレートリーダー(PowerscanHT, 大日本製薬)にて37℃を維持しながら測定した。測定は3回行いone-way ANOVAを用いて解析した。
96ウェルプレートでHEK293細胞を培養し、pcDNA3.1/MycHis-SOD1(野生型やG93A, G85r)とmockあるいはMmプロテアソームαmβ1、Mmプロテアソームαβをトランスフェクションした。24時間後に血清を含まない培養液に交換し、更に24時間後にApo-ONE Homogeneous Caspase-3/7 Assay (Promega)を用いて付属マニュアルに沿って解析した。
(1)Mmプロテアソームのクローニングと発現
Mmプロテアソームα(Gene Bank GeneID:1480962)とβ(Gene Bank GeneID:1479036)サブユニットをMmのゲノムからクローニングし、さらに図1Aに示す通りN末アミノ酸2?13を欠損させたΔ(2-13)αサブユニット(Δα)ベクターを作製した。この2?13アミノ酸は20Sプロテアソームで基質の出入りを調節するgate(門)として働く事が知られている(参考文献19)。一方、変異βサブユニット(Thr1Cys)も作製した。古細菌プロテアソームβサブユニットのThr1はプロテアソームの活性中心である(参考文献20)。また、以後の実験はNeuro2aとHEK293細胞を用いて行われたが、どちらもほぼ同様の結果を得ている。
まず、Mmプロテアソームサブユニットの発現を確認するためにHEK293細胞にmock, α、Δα、β、mβ1サブユニットをトランスフェクションし、ウエスタンブロットにて解析した。図1Bは抗αサブユニット抗体及び抗βサブユニット抗体は、Mmプロテアソームα、Δα、βサブユニットをそれぞれ認識していることを示す。また、内在性のプロテアソームサブユニットもごく僅かに認識されていることがわかる。Ni-NTA pull down解析の結果、β又はmβ1サブユニットと共にα、Δαサブニットが共沈されることが示される(図1C)。また、沈殿サンプルのプロテアソーム活性を測定した結果、Mmプロテアソームαβにてキモトリプシン様活性が有意に高くなっていた(図1D)。
グリセオール濃度勾配超遠心によって、Mmプロテアソームαβ、Δαβ、αmβ1はヒト(human)プロテアソームα1、α5サブユニットと同じ分画(20-25/37)に分けられており、ヒト20Sプロテアソームと同等の分子量を有すると推測された。また、20-25分画のHis抗体にて検出されるバンド濃度の合計は全てのフラクションにおけるHisバンド濃度の合計の80?90%を占めていた。以上の結果より、Mmプロテアソームサブユニットα、Δα、β、mβ1は真核細胞内において共同で適切に機能的な複合体を形成することが示された。尚、MmプロテアソームΔαβは毒性を示したため、以後の実験は主にMmプロテアソームαβとαmβ1を用いて行った。
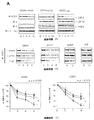
次に我々はMmプロテアソームと変異SOD1タンパク質(SOD1G85R、SOD1G37R、SOD1G93A及びSOD1H46R)を共に発現させてその影響を調べた。培養細胞系においてはSOD1G85RやSOD1G37R、SOD1G93AはSOD1H46Rより毒性が強く、また家族性ALS例においてもSOD1G85RやSOD1G37R、SOD1G93AはSOD1H46Rよりも病勢が強い。ウエスタンブロット解析により、変異SOD1発現量はMmプロテアソームαβの発現量が多くなるにつれて減少することが示された(図2)。しかし野生型SOD1はMmプロテアソームαβの発現により影響を受けず、さらに変異SOD1発現はMmプロテアソームαmβ1の発現により影響されなかった。これは変異SOD1発現量の変化にはMmプロテアソーム活性が重要であることを示している。SOD1H46R発現量の減少の程度が少ないのは他の変異SOD1種に比べて毒性が小さい為であるかもしれない。
変異SOD1の発現量低下が分解の促進によるものか生成量の低下によるものかを調べる為に我々はNeuro2a細胞を用いて変異SOD1タンパク質の分解速度を検討した(図3A、B)。タンパク質合成を停止するサイクロヘキシミドを用いた追跡解析において、変異体特異的にSOD1タンパク質の分解が促進されていることが示された(図3A)。また、α、βサブユニットの発現量の変化は無い(図3A)。野生型SOD1の分解はMmプロテアソームαβの発現には影響されていない。パルスチェイス解析では35SでラベルされたSOD1G93Aの分解がMmプロテアソームαβと共に発現させた細胞で有意に促進されていることが示された(図3B)。これらの事実はMmプロテアソームの活性中心が変異SOD1の分解に極めて重要な働きを担っていることを示唆している。
次に我々はHEK293細胞においてMmプロテアソームαβ、αmβ1及びmockとSOD1(野生型、SOD1G85R、SOD1G93A)を共発現させた際の細胞毒性の変化をMTS解析によって調べた(図4)。野生型SOD1とMmプロテアソームαβの発現量を増加させてもその細胞毒性に変化は無かった(図4)。しかし、変異SOD1とMmプロテアソームαβを発現させた細胞は変異SOD1の発現量依存的に細胞毒性が増し、Mmプロテアソームαβの発現量依存的に細胞毒性が軽減された(図4B、C)。また、この軽減効果はMmプロテアソームαmβ1では確認できなかった。変異SOD1の細胞毒性はカスパーゼ・ファミリー(caspase family)タンパク質の活性化、特にカスパーゼ3の活性化が関与しているとされている(参考文献21)。カスパーゼ3/7の蛍光基質を用いてMmプロテアソームαβ、αmβ1及びmockとSOD1(野生型、SOD1G85R、SOD1G93A)を共発現させた際のカスパーゼ3/7の活性を調べたところ、Mmプロテアソームαβはカスパーゼ3/7の活性化を抑制していることが示された(図4D)。以上の結果よりMmプロテアソームαβは変異SOD1による細胞毒性を軽減させる効果を持つことが示された。
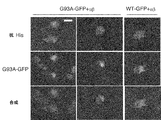
古細菌プロテアソームの複合体形成の過程においてαリングの形成はβサブユニットの集合に必要であり(参考文献20)、また図1Eに示した実験結果から大部分のβサブユニットはプロテアソーム複合体形成に使われることが判明したため、βサブユニットの局在はほぼMmプロテアソームの局在と一致する。そこで我々はHis抗体を用いてMmプロテアソームの局在状態を調べた。GFPタグを付けた野生型SOD1及び変異SOD1G93AベクターをMmプロテアソームαβと共に発現させ、固定後抗His抗体で染色した。その結果、GFP陽性SOD1G93A凝集体はHis抗体陽性であり、また野生型SOD1は抗His抗体と細胞質内に均一に存在することが示された(図5)。GFP陰性の抗His抗体陽性凝集体は無く、変異SOD1と共に凝集体を形成していることが示唆された。同様の結果はNeuro2a細胞でも確認された。
Mmプロテアソームが凝集体を形成し易いタンパク質を分解できるかどうかを調べる為、次に我々はSBMAの原因タンパク質である、異常に伸長した97回の繰り返しポリグルタミン鎖を持つアンドロゲンレセプター(97Q-AR)について検討した。SOD1タンパク質で得られた結果と同様に、97Q-ARの発現量はMmプロテアソームαβの発現量が多くなるにつれて減少したが、Mmプロテアソームαmβ1を発現させても97Q-ARの発現は影響を受けなかった(図6A)。また、野生型AR(24回の繰り返しポリグルタミン鎖を持つAR)はMmプロテアソームαβの発現量が多くなってもその発現量に変化は見られなかった。サイクロヘキシミド追跡解析では97Q-ARの分解はMmプロテアソームαβの存在下で促進されていたが、Mmプロテアソームαmβ1の存在下では97Q-QARの発現量に変化は無かった(図6B)。MTS解析では24Q-ARと異なり、97Q-ARにより毒性を認めたがその毒性はMmプロテアソームαβを発現させることにより軽減された(図6C)。これらの結果は、Mmプロテアソームαβは、凝集体を形成し易い異常に伸長したポリグルタミン鎖を持つARの細胞内分解を促進させ、またその細胞毒性を軽減することを示している。
凝集体を形成し易い他のタンパク質の分解が促進されるかどうかを検討するため、α-シヌクレイン(野生型、A53T、A30P)と6種のアイソフォームのtau(C末におけるmicrotuble binding domainの繰り返し数が3か4かによって2種に分けられ、さらにN末における29個のアミノ酸の挿入の数が2、1、又は0かによって3種に分けられ、合計6種となる)を用いて解析した。変異SOD1と97Q-ARの結果と同様にMmプロテアソームαβの存在下にて野生型、A53T、A30Pと全てのα-シヌクレインの発現量は減少し、また全てのアイソフォームのtauも減少した(図7A、B)。野生型SOD1とARの発現はMmプロテアソームαβの存在下においても減少しなかったが、α-シヌクレインやtauは野生型でも減少した。
次に我々は凝集体を形成し難いLacZや、GFPを単独で発現させてその発現量の変化を調べたが、Mmプロテアソームαβの存在下でもこれらのタンパク質の発現量に全く変化はなかった(図7C)。
今回我々は真核細胞内において古細菌のMmプロテアソームα、βサブユニットがタンパク質分解能を持った機能的なプロテアソーム複合体を形成し、凝集体を形成し易い、神経変性疾患に関連したタンパク質の分解を促進することを示した。古細菌のプロテアソームは、当初はキモトリプシン様活性を有するものと考えられていたが、後の研究によって実はかなり多様な分解能を持つことが示され、14個(7×2)の活性中心を持っていることがわかっている(参考文献21)。また、古細菌のプロテアソームは、各1種類のα、βサブユニットから構成され(参考文献6)、古細菌のプロテアソームの機能と真核細胞のプロテアソームの機能をin vitroで比較した実験によると、古細菌のプロテアソームはポリグルタミン鎖を分解する能力が真核細胞のプロテアソームに比べて遥かに高いことが示されている(参考文献9)。我々は古細菌のプロテアソームが有するこの潜在的な能力とその扱い易さを利用して、真核細胞のプロテアソーム系で分解できなかったものを分解しようと試みた。以上の実験結果は、真核細胞内において古細菌のプロテアソームが、凝集体を形成し易いタンパク質の分解を促進したことを示した初めての報告である。
しかし、α-シヌクレインとtauは野生型でもMmプロテアソームαβによって発現量の低下を来した(図7)。ここで、α-シヌクレインとtauについては、SOD1やARの場合と異なり、パーキンソン病、アルツハイマー病においてそれぞれの野生型タンパク質が蓄積していることが重要である。Presynapticタンパク質であるα-シヌクレインの凝集体はsynucleopathyといった弧発性や家族性のパーキンソン病、瀰漫性レビー小体病、多系統萎縮症等で認める(参考文献24)。弧発性パーキンソン病患者において野生型のα-シヌクレインが蓄積し、さらに発現量も増加していることが示されている(参考文献25)。プロテアソームの機能低下はα-シヌクレインの分解を妨げ、結果としてさらにα-シヌクレインの異常凝集が形成されることとなる(参考文献26)。tauタンパク質はアルツハイマー病において神経細胞内にneurufibrillary tangleとして認められる(参考文献27)。プロテアソームの機能低下はアルツハイマー病患者の脳においても報告されている(参考文献28)。α-シヌクレインもtauタンパク質も比較的容易に異常な立体構造をとるため、それが凝集体形成に繋がる(参考文献29、30)。おそらくMmプロテアソームαβはこれらのタンパク質の分解を促進したと考えられる。Mmプロテアソームαβは、凝集体を形成し易い広範なタンパク質の分解を促進すると期待される。反面、Mmプロテアソームαβは、細胞内に豊富にあるGAPDHや、外来性で凝集体を比較的形成し難いGFPやLacZの分解を促進しなかった。
1. Hershko, A. Ciechanover, A. (1998) Annu. Rev. Biochem. 67, 425-479
2. Puhler, G., Weinkauf, S., Bachmann, L., Muller, S., Engel, A., Hegerl, R., Baumeister, W. (1992) EMBO J. 11, 1607-1616
3. Zwickl, P., Kleinz, J., Baumeister, W. (1994) Nature Struct. Biol. 1, 765-770
4. Seemuller, E., Lupas, A., Stock, D., Lowe, J., Huber, R., Baumeister, W. (1995) Science 268, 579-582
5. Grziwa, A., Baumeister, W., Dahlmann, B., Kopp, F. (1991) FEBS Lett. 290, 186-190
6. Baumeister, W., Walz, J., Zuhl, F., Seemüller, E. (1998) Cell 92, 367-380
7. Zwickl, P., Goldberg, A.L., Baumeister, W. (2000) Proteasomes: The World of Regulatory Proteolysis, Landes Bioscience, Georgetown, TX
8. Zwickl, P., Ng, D., Woo, K.M., Klenk, H.P., Goldberg, A.L. (1999) J. Biol. Chem. 274, 26008-26014
9. Venkatraman, P., Wetzel, R., Tanaka, M., Nukina, N., Goldberg, A.L. (2004) Mol. Cell 14, 95-104
10. Ciechanover A, Orian A, Schwartz AL. (2000) J. Cell Biochem. 77, 40-51
11. Kabashi, E., Agar, J.N., Taylor, D.M., Minotti, S., Durham, H.D. (2004) J. Neurochem. 89, 1325-35
12. Bailey, C.K., Andriola, I.F., Kampinga, H.H. and Merry, D.E. (2002) Hum. Mol. Genet. 11, 515-523
13. Chen, Q., Thorpe, J., Keller, J.N., (2005) J. Biol. Chem. 26, 30009-30017
14. Keck, S., Nitsch, R., Grune, T., Ullrich, O. (2003) J. Neurochem. 85, 115-122
15. Bence, N.F., Sampat, R.M. and Kopito, R.R. (2001) Science 292, 1552-1555
16. Niwa, J., Ishigaki, S., Hishikawa, N., Yamamoto, M., Doyu, M., Murata, S., Tanaka, K., Taniguchi, N., Sobue, G. (2002) J. Biol. Chem. 277, 36793-36798
17. Waza, M., Adachi, H., Katsuno, M., Minamiyama, M., Sang, C., Tanaka, F., Inukai, A., Doyu, M., Sobue, G. (2005) Nature Med. 11, 1088-1095
18. Ito, T., Niwa, J., Hishikawa, N., Ishigaki, S., Doyu, M., Sobue, G. (2003) J. Biol. Chem. 278, 29106-29114
19. Benaroudj, N., Zwick, P., Seemüller, E., Baumeister, W., Goldberg, A.L. (2003) Mol. Cell 11, 69-78
20. Seemüller, E., Lupas, A., Baumeister, W. (1996) Nature 382, 468-471.
21. Dahlmann, B., Kopp, F., Kuehn, L., Hegerl, R., Pfeifer, G., Baumeister, W. (1991) Biomed. Biochim. Acta 50, 465-469
22. Gurney, M.E., Pu, H., Chiu, A.Y., Dal Canto, M.C., Polchow, C.Y., Alexander, D.D., Caliendo, J., Hentati, A., Kwon, Y.W., Deng, H.X., Chen, W., Zhai, F., Sufit, R.L., Siddique, T. (1994) Science 264, 1772-1775
23. Adachi, H., Kume, A., Li, M., Nakagomi, Y., Niwa, H., Do, J., Sang, C., Kobayashi, Y., Doyu, M., Sobue, G. (2001) Hum. Mol. Genet. 10, 1039-1048
24. Trojanowski, J.Q., Lee, V.M. (2003) Ann. N. Y. Acad. Sci. 991, 107-110
25. Miller, D.W., Hague, S.M., Clarimon, J., Baptista, M., Gwinn-Hardy, K., cookson, M.R., Singleton, A.B. (2004) Neurology 62, 1835-1838
26. Liu, C.W., Corboy, M.J., DeMartino, G.N., and Thomas, P.J. (2003) Science 299, 408-411
27. Selkoe, D. J. (1991) Neuron 6, 487-498
28. Keller, J.N., Hanni, K.B., Markesbery, W. R. (2000) J. Neurochem. 75, 436-439
29. Hashimoto, M., Hsu, L.J., Sisk, A., Xia, Y., Takeda, A., Sundsmo, M., Masliah, E. (1998) Brain Res. 799, 301-306
30. Khlistunova, I., Biernat, J., Wang, Y., Pickhardt, M., von Bergen, M., Gazova, Z., Mandelkow, E., Mandelkow, E.M. (2005) J. Biol. Chem. 24, in press
31. Benaroudj, N., Goldberg, A.L. (2000) Nat. Cell. Biol. 2, 833-839
32. Groll, M., Bajorek, M., Kohler, A., Moroder, L., Rubin, D.M., Huber, R., Glickman, M.H., Finley, D. (2000) Nature Struct. Biol. 7, 1062-1067
33. Lowe, J., Stock, D., Jap, B., Zwickl, P., Baumeister, W., Huber, R. (1995) Science 268, 533-539
34. Patel, Y.J., Payne Smith, M.D., de Belleroche, J., Latchman, D.S. (2005) Brain Res. Mol. Brain Res. 134, 256-274
本明細書の中で明示した論文、公開特許公報、及び特許公報などの内容は、その全ての内容を援用によって引用することとする。
Claims (6)
- 真核細胞用プロモーターに作動可能に連結された、メタノサルシナ・マゼイのプロテアソームαサブユニット及びβサブユニットをコードする核酸配列を含有する発現コンストラクトを標的真核細胞に導入するステップを含む、標的真核細胞内で凝集体形成性タンパク質が凝集体を形成することを抑制する方法であって、
前記標的真核細胞が、単離されたヒト細胞、又は非ヒト哺乳動物細胞である、方法。 - 前記αサブユニットが、配列番号1に示すアミノ酸配列からなり、
前記βサブユニットが、配列番号3に示すアミノ酸配列からなる、請求項1に記載の方法。 - 前記核酸配列が配列番号2に示すDNA配列及び配列番号4に示すDNA配列を含む、請求項1に記載の方法。
- 前記真核細胞用プロモーターが哺乳動物用プロモーターである、請求項1〜3のいずれかに記載の方法。
- 前記凝集体形成性タンパク質が、変異スーパーオキシド・ジスムターゼ1、異常に伸長したポリグルタミン鎖を持つアンドロゲン受容体、α−シヌクレイン、及びタウからなる群より選択されるタンパク質である、請求項1〜4のいずれかに記載の方法。
- メタノサルシナ・マゼイのプロテアソームαサブユニット及びβサブユニットを標的真核細胞内で強制発現させるステップを含む、標的真核細胞内で凝集体形成性タンパク質が凝集体を形成することを抑制する方法であって、
前記標的真核細胞が、単離されたヒト細胞、又は非ヒト哺乳動物細胞である、方法。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2008506290A JP5286523B2 (ja) | 2006-03-20 | 2007-03-19 | 凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法 |
Applications Claiming Priority (4)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2006076789 | 2006-03-20 | ||
| JP2006076789 | 2006-03-20 | ||
| PCT/JP2007/055493 WO2007108434A1 (ja) | 2006-03-20 | 2007-03-19 | 凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法 |
| JP2008506290A JP5286523B2 (ja) | 2006-03-20 | 2007-03-19 | 凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JPWO2007108434A1 JPWO2007108434A1 (ja) | 2009-08-06 |
| JP5286523B2 true JP5286523B2 (ja) | 2013-09-11 |
Family
ID=38522463
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2008506290A Active JP5286523B2 (ja) | 2006-03-20 | 2007-03-19 | 凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法 |
Country Status (3)
| Country | Link |
|---|---|
| US (1) | US20100279402A1 (ja) |
| JP (1) | JP5286523B2 (ja) |
| WO (1) | WO2007108434A1 (ja) |
Cited By (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| KR101859559B1 (ko) * | 2016-06-13 | 2018-05-21 | 서울대학교산학협력단 | 오픈 게이트 프로테아좀을 포함하는 단백질 응집과 연관된 질병의 예방 또는 치료용 약학적 조성물 |
Families Citing this family (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US8903825B2 (en) * | 2011-05-24 | 2014-12-02 | Namesforlife Llc | Semiotic indexing of digital resources |
| CN105624126B (zh) * | 2016-02-23 | 2017-02-01 | 杭州睿道医药科技有限公司 | 一种新型重组高稳定性超氧化物歧化酶及其应用 |
Family Cites Families (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| WO2005094423A2 (en) * | 2004-02-26 | 2005-10-13 | President And Fellows Of Harvard College | Selective inhibition of proteasomes of tuberculosis and other bacteria |
| WO2005116224A2 (en) * | 2004-05-18 | 2005-12-08 | Children's Memorial Hospital | Tetracycline-regulated adeno-associated viral (aav) vectors for gene delivery to the nervous system |
-
2007
- 2007-03-19 WO PCT/JP2007/055493 patent/WO2007108434A1/ja not_active Ceased
- 2007-03-19 US US12/225,311 patent/US20100279402A1/en not_active Abandoned
- 2007-03-19 JP JP2008506290A patent/JP5286523B2/ja active Active
Non-Patent Citations (8)
| Title |
|---|
| JPN6012048766; Mol. Cell Vol. 14, 2004, p. 95-104 * |
| JPN6012048768; J. Cell. Biol. Vol. 172, No. 4, 200602, p. 497-504 * |
| JPN6012048770; J. Biol. Chem. Vol. 280, No. 12, 2005, p. 11635-11640 * |
| JPN6012048773; J. Biol. Chem. Vol. 278, No. 24, 2003, p. 22044-22055 * |
| JPN6012048775; Eur. J. Cell Biol. Vol. 73, 1997, p. 105-113 * |
| JPN6012048778; Protein, The National Center for Biotechnology Information, Accession No. Q8PTU1, [online] , 20060207 * |
| JPN6012048780; Protein, The National Center for Biotechnology Information, Accession No. Q8PZ04, [online] , 20031001 * |
| JPN6012048781; J. Biol. Chem. Vol. 273, No. 4, 1998, p. 1982-1989 * |
Cited By (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| KR101859559B1 (ko) * | 2016-06-13 | 2018-05-21 | 서울대학교산학협력단 | 오픈 게이트 프로테아좀을 포함하는 단백질 응집과 연관된 질병의 예방 또는 치료용 약학적 조성물 |
Also Published As
| Publication number | Publication date |
|---|---|
| US20100279402A1 (en) | 2010-11-04 |
| WO2007108434A1 (ja) | 2007-09-27 |
| JPWO2007108434A1 (ja) | 2009-08-06 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| JP7011467B2 (ja) | ミスフォールドタンパク質の分解のための組成物及び方法 | |
| AU2018375192B2 (en) | Engineered DNA binding proteins | |
| Antonellis et al. | The role of aminoacyl-tRNA synthetases in genetic diseases | |
| Beirowski et al. | Non-nuclear WldS determines its neuroprotective efficacy for axons and synapses in vivo | |
| Liu et al. | Ubiquilin-1 protects cells from oxidative stress and ischemic stroke caused tissue injury in mice | |
| Shi et al. | Restoration of dystrophin expression in mice by suppressing a nonsense mutation through the incorporation of unnatural amino acids | |
| US10894077B2 (en) | Synthetic methylmalonyl-CoA mutase transgene for the treatment of MUT class methylmalonic acidemia (MMA) | |
| Nemazanyy et al. | Defects of Vps15 in skeletal muscles lead to autophagic vacuolar myopathy and lysosomal disease | |
| Park et al. | UNC-18 and tomosyn antagonistically control synaptic vesicle priming downstream of UNC-13 in Caenorhabditis elegans | |
| EP2274324B1 (en) | Substances and compositions for enhancing dna repair and methods of use | |
| Tian et al. | The intronic GABRG2 mutation, IVS6+ 2T→ G, associated with childhood absence epilepsy altered subunit mRNA intron splicing, activated nonsense-mediated decay, and produced a stable truncated γ2 subunit | |
| Signes et al. | APOPT1/COA8 assists COX assembly and is oppositely regulated by UPS and ROS | |
| Kim et al. | N-terminal truncated UCH-L1 prevents Parkinson's disease associated damage | |
| EP3291843A1 (en) | Modified ube3a gene for a gene therapy approach for angelman syndrome | |
| Nagao et al. | Higd1a improves respiratory function in the models of mitochondrial disorder | |
| US20200113955A1 (en) | Modified ube3a gene for a gene therapy approach for angelman syndrome | |
| US11530389B2 (en) | Methods and compositions for rapid generation of single and multiplexed reporters in cells | |
| US20180087041A1 (en) | Tagged form of mut enzyme, genetic constructs incorporating it, and its use in gene thereapy | |
| Altunay et al. | C1ql1 expression in oligodendrocyte progenitor cells promotes oligodendrocyte differentiation | |
| JPWO2007108434A1 (ja) | 凝集体形成性タンパク質分解用の発現コンストラクト、及び凝集体形成性タンパク質が凝集体を形成することを抑制する方法 | |
| Hu et al. | Targeting multiple genetic defects of mitochondrial diseases with a single bacterial lipoate protein ligase | |
| Yang et al. | AAV-based temporal APOE4-to-APOE2 replacement reveals rebound adaptation and RAB24-mediated Aβ and cholesterol dysregulation | |
| Paul et al. | Adenovirus expressing an NPC1‐GFP fusion gene corrects neuronal and nonneuronal defects associated with Niemann pick type C disease | |
| CN117043324A (zh) | 用于治疗先天性肌营养不良的治疗性lama2载荷 | |
| RU2784927C1 (ru) | Отличные от человека животные, включающие в себя гуманизированный ttr локус, и способы применения |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20100224 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20120914 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20121112 |
|
| A02 | Decision of refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A02 Effective date: 20130104 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20130402 |
|
| A911 | Transfer to examiner for re-examination before appeal (zenchi) |
Free format text: JAPANESE INTERMEDIATE CODE: A911 Effective date: 20130410 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20130501 |
|
| R150 | Certificate of patent or registration of utility model |
Ref document number: 5286523 Country of ref document: JP Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| S533 | Written request for registration of change of name |
Free format text: JAPANESE INTERMEDIATE CODE: R313533 |
|
| R350 | Written notification of registration of transfer |
Free format text: JAPANESE INTERMEDIATE CODE: R350 |
|
| S111 | Request for change of ownership or part of ownership |
Free format text: JAPANESE INTERMEDIATE CODE: R313113 |
|
| R360 | Written notification for declining of transfer of rights |
Free format text: JAPANESE INTERMEDIATE CODE: R360 |
|
| R350 | Written notification of registration of transfer |
Free format text: JAPANESE INTERMEDIATE CODE: R350 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |