JP6887663B2 - アグマチンの製造方法及びその利用 - Google Patents
アグマチンの製造方法及びその利用 Download PDFInfo
- Publication number
- JP6887663B2 JP6887663B2 JP2016242522A JP2016242522A JP6887663B2 JP 6887663 B2 JP6887663 B2 JP 6887663B2 JP 2016242522 A JP2016242522 A JP 2016242522A JP 2016242522 A JP2016242522 A JP 2016242522A JP 6887663 B2 JP6887663 B2 JP 6887663B2
- Authority
- JP
- Japan
- Prior art keywords
- agmatine
- culture
- acid
- fermentation
- sake
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Fee Related
Links
Images




Classifications
-
- Y—GENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y02—TECHNOLOGIES OR APPLICATIONS FOR MITIGATION OR ADAPTATION AGAINST CLIMATE CHANGE
- Y02E—REDUCTION OF GREENHOUSE GAS [GHG] EMISSIONS, RELATED TO ENERGY GENERATION, TRANSMISSION OR DISTRIBUTION
- Y02E50/00—Technologies for the production of fuel of non-fossil origin
- Y02E50/10—Biofuels, e.g. bio-diesel
Landscapes
- Preparation Of Compounds By Using Micro-Organisms (AREA)
Description
植物、アーキアや一部のバクテリアは、アルギニンの脱炭酸により合成されるアグマチンを経由してポリアミンを合成する(非特許文献2)。哺乳類もアルギニン脱炭酸酵素(arginine decarboxylase、ADC)を有するがその活性は弱く、細胞内に存在するアグマチンの大部分は食餌由来である(非特許文献1)。
発酵原料及び有機酸の存在下において培養することによって、Aspergillus oryzaeにアグマチン含有生成物を発酵により産生させる工程
を含む、アグマチンの製造方法。
項2.
前記培養を、pH6以下で行う、項1に記載の製造方法。
項3.
前記培養の開始時点以後、48時間経過時点までに、培養pHが6以下となり、その時点から少なくとも48時間以上前記培養をpH6以下にて行う、項1に記載の製造方法。
項4.
前記有機酸が、乳酸、コハク酸、クエン酸、酢酸、ピルビン酸及びリンゴ酸からなる群より選択される少なくとも一種の有機酸である、項1〜3のいずれか一項に記載の製造方法。
項5.
前記培養を、27〜33℃の範囲内で行う、項1〜4のいずれか一項に記載の製造方法。
項6.
前記発酵原料が、イネ科植物の種子、マメ科植物の種子、芋類の根及び胡麻類の種子、並びにそれらの加工品からなる群より選択される少なくとも一種の天然素材由来物、及び/又はL−アルギニンである、項1〜5のいずれか一項に記載の製造方法。
項7.
前記アグマチン含有生成物が、糖化液である、項1〜6のいずれか一項に記載の製造方法。
項8.
項1〜6のいずれか一項に記載の製造方法により得られうる、アグマチン含有発酵物。
項9.
(1)項7に記載の工程;及び
(2)前記糖化液を原料として用いてアルコール発酵を行い、アルコール液を得る工程
を含む、アルコール液の製造方法。
項10.
(1)項7に記載の工程;
(2)前記糖化液を原料として用いてアルコール発酵を行い、アルコール液を得る工程;及び
(3)前記アルコール液を原料として用いて酢酸発酵を行い、酢を得る工程
を含む、酢の製造方法。
1.1 Aspergillus oryzae
Aspergillus oryzaeとしては、特に限定されず、幅広く使用することができる。例えば、清酒用として長年に渡り使用されてきた菌株を使用すれば、生成物の安全性が保証されている製造方法を提供することができるという点で、有利である。そのような製品カテゴリーとして、例えば、アメリカ食品医薬品局(FDA)より食品添加物に与えられる安全基準合格証である、GRAS(Generally Recognized As Safeの頭字語)等が挙げられる。
発酵原料としては、特に限定されず、アグマチン生合成の材料となりうるもの、特にL−アルギニン、を含むものであれば幅広く用いることができる。例えば、イネ科植物の種子、マメ科植物の種子、芋類の根及び胡麻類の種子、並びにそれらの加工品からなる群より選択される少なくとも一種の天然素材由来物を用いることができる。
有機酸としては、特に限定されず、乳酸、コハク酸、クエン酸、酢酸、ピルビン酸及びリンゴ酸等を使用できる。
培養は、通常、液体培養とする。固体培養であってもよい。
本発明の方法により、アグマチン含有生成物が得られる。アグマチン含有生成物は、アグマチンを含有する発酵物である。
市販の清酒用、及び醤油用麹菌(種麹)を用いた。両株共にAspergillus oryzaeである。
製麹は既報(財団法人日本醸造協会1978. 増補改訂 清酒製造技術)の手法に改変を加えて行った。300 gの米(特別栽培米こしひかり;神明、神戸、兵庫)を洗浄し、適量の水道水に3時間浸漬した。米をザルにあげ10分間水切りを行った後、蒸器を用いて50分間蒸した。蒸米をさらしの上に広げ、スパーテルで切り返しながら約30℃になるまで放冷した。これに0.23 gの種麹を接種して十分に混和した後、さらしごとタッパー(15.8 cm × 23.1 cm × 5.4 cm)に移した。水で濡らした後固く絞ったガーゼを、種麹を接種した蒸米の上に広げ、30℃で保温(培養)した。20時間後及び28時間後に手入れ(財団法人 日本醸造協会 1978. 増補改訂清酒製造技術)を行い、蒸米をほぐす事で菌糸の蒸米表面への展開・定着を促進した。2度目の手入れの後、タッパーを34℃恒温槽へ移し、蒸米表面の乾燥、菌糸の蒸米内部への伸長、及び細胞外分泌酵素群(アミラーゼ及びプロテアーゼ)の産生を誘導した(財団法人 日本醸造協会 1978. 増補改訂清酒製造技術)。45時間後、菌糸が蒸米内部まで十分に伸長している事を確認した後、3度目の手入れを行った。室温で2時間乾燥し、これを米麹とした。米麹は使用時まで4℃で保存した。
米麹及び蒸米培地を用いた糖化実験を、以下に従い行った。50 gの米麹、L-乳酸、及び163 mlの水道水を500 ml容三角フラスコに分注し、培養温度(20℃、30℃、40℃、或いは50℃)で1.5時間保温する事で液温を平衡化した。特に断りのない限り、L-乳酸終濃度を3.1 mM (0.025% [vol/vol])とした。75 gの米を上記同様の手法で蒸し、室温になるまで放冷した。これを三角フラスコに添加し、培養液総量を300 mlとした。フラスコを目的温度に設定した恒温槽に移して培養を開始した。24時間毎に培養液を撹拌し、遠心分離(20,600 × g、5分)により培養上清を回収した。培養上清は孔径0.45 μmのフィルター(Millex LH filter; Millipore, Bedford, MA, USA)で濾過し、液体クロマトグラフィー(HPLC)及びガスクロマトグラフィー(GC)分析に供試するまで4℃で保存した。対照実験として、精製加水分解酵素(α-アミラーゼ及びグルコアミラーゼの混合物; ナガセケムテックス、大阪)を用い、50℃で蒸米の糖化を行った。すなわち、蒸米125 gに水道水を加えて液量を300 mlとし、温浴により65℃まで加温した。そこへ、上記精製加水分解酵素を0.9 g添加し、十分に撹拌した。これを50℃に設定した恒温槽へ移し、7日間保温した。糖化液を経時的に採取し、発酵液同様に成分分析に供試した。
麹菌によるアグマチン生産の最適化を図る事を目的とし、種々の培養条件(培養温度、添加する有機酸、及び有機酸塩)を検討した。初めに、上記と同様の培養液を調製し、これを20℃、30℃、40℃、或いは50℃で培養した。続いて、L-乳酸添加量に依存したアグマチン蓄積量の変動を解析するため、L-乳酸終濃度の異なる培養液を調製し、30℃で培養した(L-乳酸濃度: 3.1 mM [0.025%、vol/vol]、12.2 mM [0.1%、vol/vol]、及び61.0 mM [0.5%、vol/vol])。併せて、乳酸イオンがアグマチン生産に与える影響を調べるため、61.0 mM L-乳酸ナトリウムを培養液に添加し培養を行った(30℃)。更に、清酒中に含まれる有機酸の影響を解析するため、培養液に61.0 mM酢酸、30.5 mMコハク酸、或いは20.3 mMクエン酸を添加し培養を行った(30℃)。なお、これら有機酸の濃度は、プロトン終濃度が61.0 mMとなる様調整した(L-乳酸61.0 mMから電離しうるプロトン相当)。全ての培養において培養上清を経時的に採取し、上清中のアグマチンをHPLCにより定量した。また、遊離アルギニン(アグマチン合成の基質)がアグマチン生産に与える影響を解析した。すなわち、50 g 米麹に種々の濃度のL-乳酸、及び水道水を添加して液量300 mlとし、ここへ10 mM L-アルギニンを添加して30℃で保温して、液中に蓄積したアグマチンをHPLCにより定量した。
培養上清、食酢、及び甘酒からのポリアミン抽出、及びHPLCによるポリアミンの定性・定量は既報(Morimoto N, Fukuda W, Nakajima N, Masuda T, Terui Y, Kanai T, Oshima T, Imanaka T, Fujiwara S. 2010. Dual biosynthesis pathway for longer-chain polyamines in the hyperthermophilic archaeon Thermococcus kodakarensis. J. Bacteriol. 192:4991-5001., 森屋 利幸 2015. HPLCによるポリアミン分析. ポリアミン 2:15-18.)に準拠した。すなわち、供試サンプルを超純水で適宜希釈し、得られた希釈液500 μlに対して50 μlの10% (wt/vol)トリクロロ酢酸(trichloroacetic acid、TCA; 和光純薬、大阪)を加え、ボルテックスを用いて1分間十分に混和し、核酸、タンパク質等の生体高分子を変性させると共に、それらからポリアミンを解離させた。遠心分離(4℃、20,600 × g、5分)により残渣を沈殿させ、遠心上清をポリアミン画分として回収した。内部標準物質(カルドペンタミン或いはスペルミン)を、終濃度10 μMとなる様ポリアミン画分に添加し、孔径0.45 μlのフィルター(Millipore)で濾過した。濾液100 μlを以降のHPLC解析に供試した。
(6−1)発酵基材
脱脂ゴマ粕を供試した。
脱脂ゴマ粕の発酵には、清酒用或いは醤油用麹(共にAspergillus oryzae)を供試した。製麹工程は既報(財団法人 日本醸造協会 1978. 増補改訂 清酒製造技術)に準拠した。
20 gの脱脂ゴマ粕、0.15 mlのL-乳酸、0.3 gの食品用A. niger由来セルラーゼ(AC40; エイチビィアイ株式会社、宍粟、兵庫)、及び100 mlの水道水を300 ml容三角フラスコに分注し、1時間静置した(粕への吸水)。20 gの清酒用或いは醤油用米麹を添加して総量を150 mlとし、30℃で3日間保温した(静置培養)。培養液の撹拌及び培養液遠心上清(17,900 × g、2分)の回収は1日毎に行った。得られた遠心上清をゴマ醪とし、孔径0.45 μmのフィルター(GLクロマトディスク13P; GLサイエンス株式会社、東京)で濾過した後、高速液体クロマトグラフィー(high-performance liquid chromatography、HPLC)解析に供試した.
ゴマ醪に含まれるポリアミンの定量は既報(Morimoto et al. 2010. J. Bacteriol. 192:4991.)に準拠した。
(1)食酢に含まれるポリアミン
既報(Galgano F, Caruso M, Condelli N, Favati F. 2012. Focused review: agmatine in fermented foods. Front. Microbiol. 3:199., Okamoto A, Sugi E, Koizumi Y, Yanagida F, Udaka S. 1997. Polyamine content of ordinary foodstuff and various fermented foods. Biosci. Biotechnol. Biochem. 61:1582-1584.)によれば、清酒は著量のアグマチン(~ 2 mM)を含有するにも関わらず、それを原材料として製造される米酢は、アグマチンを含めたいかなるポリアミンも含んでいない。近年のゲノム解析(Andres-Barrao C, Falquet L, Calderon-Copete SP, Descombes P, Ortega Perez R, Barja F. 2011. Genome sequences of the high-acetic acid-resistant bacteria Gluconacetobacter europaeus LMG 18890Tand G. europaeus LMG 18494 (reference strains), G. europaeus 5P3, and Gluconacetobacter oboediens 174Bp2 (isolated from vinegar). J. Bacteriol. 193:2670-2671., Azuma Y, Hosoyama A, Matsutani M, Furuya N, Horikawa H, Harada T, Hirakawa H, Kuhara S, Matsushita K, Fujita N, Shirai M. 2009. Whole-genome analyses reveal genetic instability of Acetobacter pasteurianus. Nucleic Acids Res. 37:5768-5783.)から、食酢醸造に関与する酢酸菌はアグマチン脱尿素酵素(アグマチナーゼ)遺伝子オルソログを保持する事が推測されており、酢酸菌によるアグマチンのプトレスシンへの転換が示唆されるものの、上記文献に例示される食酢からはプトレスシン、及びスペルミジンも検出されない事から、上記は互いに矛盾する結果である。これを検証するため、製造手法の異なる自社米酢2種のポリアミン含量を、HPLCにより解析した。供試サンプルとして、米のみを原材料として用い、麹菌及び酵母による並行複発酵で得られた酒醪を、酢酸菌を用いた酢酸発酵により食酢へ転換したもの(「純米酢1、2、及び3」とする)、及び蒸米を精製加水分解酵素(α-アミラーゼ及びグルコアミラーゼ)及び米麹を用いて高温(65℃)で糖化した糖化液と、醸造(精製)エタノールの混合液を酢酸発酵させたもの(「米酢」とする)を用いた(表1)。

既報(Galgano F, Caruso M, Condelli N, Favati F. 2012. Focused review: agmatine in fermented foods. Front. Microbiol. 3:199., Okamoto A, Sugi E, Koizumi Y, Yanagida F, Udaka S. 1997. Polyamine content of ordinary foodstuff and various fermented foods. Biosci. Biotechnol. Biochem. 61:1582-1584.)によれば、清酒に含まれるアグマチンの生産微生物として、酵母、麹菌、乳酸菌、或いは硝酸還元菌が示唆されている。これら知見、並びに上記の結果を踏まえ、初めに、麹菌のアグマチン生産能を、蒸米培地を用いた糖化実験を行う事で検証した。麹菌株として、清酒用、或いは醤油用麹を用いた。一般に、醤油用麹菌はプロテアーゼ生産性、及びそれらの酵素活性が清酒用麹と比較して高く、アグマチン合成の基質となるアルギニンをより多く蓄積しうる醤油用麹菌は、本研究の目的に適した菌株であると考えられた。雑菌汚染抑止のために3.1 mM (0.025%)のL-乳酸を添加し、20℃で7日間培養を行った。蒸米の液化は培養2日間のうちに完了した(データ示さず)。醤油用麹を接種した培養液中のアミノ酸量は予想と一致し、清酒用と比較して高かった(データ示さず)。しかしながら、清酒用麹が7日間の培養で5.06 mMのアグマチンを蓄積したのに対し、醤油用麹は痕跡量のアグマチンを蓄積するにとどまった(~ 0.2 mM) (図4)。これらの結果から、清酒用麹菌がアグマチン生産微生物である事が示された。これは、清酒が数mMのアグマチンを含むという先行知見(Galgano F, Caruso M, Condelli N, Favati F. 2012. Focused review: agmatine in fermented foods. Front. Microbiol. 3:199., Okamoto A, Sugi E, Koizumi Y, Yanagida F, Udaka S. 1997. Polyamine content of ordinary foodstuff and various fermented foods. Biosci. Biotechnol. Biochem. 61:1582-1584.)とも一致する。これらを踏まえ、以降の実験では清酒用麹菌を用いた。
清酒醸造における並行複発酵は、良好な香気成分の揮発を抑制するため低温(15℃程度)で行われるが(Takahashi K, Kohno H. 2016. Different polar metabolites and protein profiles between high- and low-quality Japanese ginjo sake. PLOS ONE 11:e0150524.)、麹菌の生育至適温度は30℃以上である(財団法人 日本醸造協会 1978. 増補改訂清酒製造技術, Kobayashi A, Sano M, Oda K, Hisada H, Hata Y, Ohashi S. 2007. The glucoamylase-encoding gene (glaB) is expressed in solid-state culture with a low water content. Biosci. Biotechnol. Biochem. 71:1797-1799., Oda K, Kakizono D, Yamada O, Iefuji H, Akita O, Iwashita K. 2006. Proteomic analysis of extracellular proteins from Aspergillus oryzae grown under submerged and solid-state culture conditions. Appl. Environ. Microbiol. 72:3448-3457.)。従って、生育至適温度に近い環境下で培養する事で、推定ADC活性の上昇、及びそれに伴うアグマチン蓄積量の上昇が期待された。これを検証するため、清酒用麹菌を用い、種々の培養温度(20℃、30℃、40℃、或いは50℃)で糖化実験を行った。対照実験として、α-アミラーゼ及びグルコアミラーゼを用いた蒸米の高温糖化(50℃)も行った。高温になる程液化の進行は速く、40℃及び50℃の系では、培養1日目で液化が完了した(データ示さず)。酵素糖化の場合、液化は数時間で完了した(データ示さず)。30℃以下では、液化は培養2-3日目に完了した(データ示さず)。一方で、アグマチン蓄積量は30℃で最大となり、6日間の培養で5.21 mMのアグマチンが蓄積した(図5)。40℃以上では、アグマチンの蓄積量は著しく減少した(6日目アグマチン濃度: 40℃、2.91 mM; 50℃、1.18 mM) (図5)。また、酵素糖化では、アグマチンを含めたいかなるポリアミンも検出されなかった(図5)。これらの結果から、清酒用麹菌を用いたアグマチン生産における至適温度は30℃である事が示された。以降の培養実験は30℃で行った。
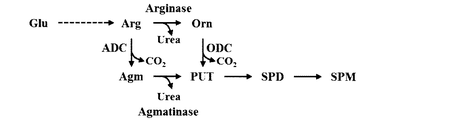
清酒用麹菌は古くから乳酸菌と共存してきた事(財団法人日本醸造協会1978. 増補改訂 清酒製造技術)、或いは近年では、雑菌汚染抑止のため酒母に醸造乳酸を添加している事から、清酒用麹菌は醸造期間を通じ、常に乳酸に暴露されていると考えられる。酵母では、酢酸、プロピオン酸、及び乳酸等の有機酸(弱酸)により、ポリアミン排出機能を有するプロトンアンチポーターの発現が誘導される事(Albertsen M, Bellahn I, Kramer R, Waffenschmidt S. 2003. Localization and function of the yeast multidrug transporter Tpo1p. J. Biol. Chem. 278:12820-12825.他)、原核生物はアミノ酸の脱炭酸を介して細胞内のプロトンを消費し、細胞内pHの恒常性を保つ事、更に脱炭酸により生じるポリアミン類を細胞外へ排出する事(Jung IL, Kim IG. 2003. Polyamines and glutamate decarboxylase-based acid resistance in Escherichia coli. J. Biol. Chem. 278:22846-22852., Samartzidou H, Mehrazin M, Xu Z, Benedik MJ, Delcour AH. 2003. Cadaverine inhibition of porin plays a role in cell survival at acidic pH. J. Bacteriol. 185:13-19., Chattopadhyay MK, Tabor H. 2013. Polyamines are critical for the induction of the glutamate decarboxylase-dependent acid resistance system in Escherichia coli. J. Biol. Chem. 288:33559-33570., Chattopadhyay MK, Keembiyehetty CN, Chen W, Tabor H. 2015. Polyamines stimulate the level of the σ38 subunit (RpoS) of Escherichia coli RNA polymerase, resulting in the induction of the glutamate decarboxylase-dependent acid response system via the gadE regulon. J. Biol. Chem. 290:17809-17821.)が知られている。これら知見から、清酒用麹菌のアグマチン生産・分泌は耐酸機構の一環であり、より強い有機酸ストレスを付与する事でアグマチン生産を促進できるものと推測された。上記を踏まえ、L-乳酸濃度を0 mM、3.1 mM (0.025%)、12.2 mM (0.1%)、或いは61.0 mM (0.5%)に調整した培養液で清酒用麹菌を培養し(糖化)、アグマチン蓄積量を解析した。培養開始時のpHは以下の通りである: 0 mM、6.26; 3.1 mM、5.13; 12.2 mM、3.90; 61.0 mM、2.95。L-乳酸添加量依存的にアグマチン蓄積量は上昇し、61.0 mM L-乳酸の添加により、3.1 mMと比較し、アグマチン蓄積量は約2倍に上昇した(7日目アグマチン濃度: 3.1 mM、4.46 mM; 61.0 mM、7.60 mM) (図6A)。61.0 mMを超えるL-乳酸を添加しても、更なるアグマチン蓄積量の増加は観察されなかった(データ示さず)。これらの結果から、アグマチンの効率的生産には61.0 mMのL-乳酸添加が有効である事が示された。一方、乳酸非添加の系ではアグマチンは蓄積せず、著量(4.60 mM)のプトレスシンが検出された(図6A)。この事から、L-乳酸により、アグマチナーゼによるアグマチンの脱尿素反応(図1)が阻害される事が示唆された。この阻害がpHの低下、或いは乳酸イオンのどちらに起因するのかを検証するため、61.0 mMのL-乳酸ナトリウムを添加して培養を行った(培養開始時のpH、6.18)。その結果、L-乳酸添加時と同様に、主たるポリアミンとしてアグマチンが検出された(培養7日目: アグマチン、3.07 mM; プトレスシン、0.56 mM) (図6B)。この事から,アグマチナーゼ(図1)は乳酸イオンをシグナル分子としたフィードバック制御機構(酵素活性阻害或いは転写抑制)により調節を受ける事が示唆された。
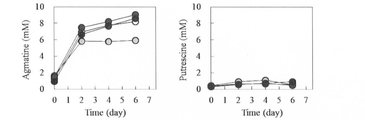
既報(浅野忠男2007. 生物工学85:63-68.)によれば、清酒中には様々な有機酸が含まれ、その内の約80%を乳酸、コハク酸、及びリンゴ酸が占める。少量成分としてクエン酸及び酢酸が含まれる(島津 善美, 藤原 正雄, 渡辺 正澄, 太田 雄一郎. 2009. 清酒に含まれる有機酸の酸味に及ぼす飲用温度の影響. 日本調理学会誌 42:327-333.)。これらを踏まえ、酢酸、コハク酸、及びクエン酸が清酒用麹菌によるアグマチン生産に与える影響を解析した。図6Aで示した様に、61.0 mMのL-乳酸(1価の酸)の添加によりアグマチン蓄積量が顕著に上昇した。各有機酸の濃度はそれぞれの価数を加味し、プロトン終濃度が61.0 mMとなる様調整した(酢酸、61.0 mM; コハク酸、30.5 mM;クエン酸、20.3 mM)。培養開始時のpHは以下の通りである: L-乳酸、3.10; 酢酸、3.81;コハク酸、3.70; クエン酸、3.19。いずれの有機酸の添加でもアグマチンが主たるポリアミンとして検出され、特にコハク酸及びクエン酸は、L-乳酸と同等のアグマチン産生促進効果を示した(培養6日目アグマチン濃度: L-乳酸、8.19 mM; コハク酸、9.04 mM;クエン酸、8.58 mM) (図7)。一方で酢酸の効果はやや低く、最終のアグマチン蓄積量は5.91 mMであった(図7) 。
上記の結果から、有機酸存在下、清酒用麹菌を用いて製造された甘酒(糖化液)は著量のアグマチンを含む事が推測された。これを検証するため、異なる製造業者より販売されている、米麹を原材料として含む5種の甘酒のアグマチン量を、HPLCにより定量した。サンプル3及び5からは約1 mMのアグマチンが検出されたが、他サンプルのアグマチン含量は痕跡量(~ 0.1 mM)であった。これらの値は、61.0 mM L-乳酸存在下、清酒用麹菌を用いて発酵させた糖化液に含まれるアグマチン量(8.19 mM) (図7及び8)と比較して著しく低い。これらの結果は、供試した甘酒が有機酸非存在下や高温条件下での糖化、或いは清酒用以外の麹菌を使用して製造された事を示唆する。
図1に示した様に、一般にアグマチンはL-アルギニンが脱炭酸される事で合成される。清酒用麹菌もL-アルギニンからアグマチンを生合成すると推測し、遊離L-アルギニンがアグマチン生産に与える影響を解析した。すなわち、清酒用米麹をL-乳酸及びL-アルギニンを含む水溶液中で保温(30℃)し、液中に蓄積したアグマチンをHPLCにより定量した。L-アルギニン及びL-乳酸共に非添加、及び10 mM L-アルギニン存在下では、実験を通じて明瞭なアグマチン蓄積が見られなかったのに対し(~ 0.2 mM)、L-アルギニン及びL-乳酸の両方を添加した場合、L-乳酸添加量依存的にアグマチン蓄積量が上昇した(60分のアグマチン濃度: 3.1 mM L-乳酸、0.33 mM; 12.2 mM L-乳酸、0.64 mM; 61.0 mM L-乳酸、0.81 mM) (図9)。この結果から、L-乳酸存在下であれば、遊離L-アルギニンは迅速にアグマチンへ転換される事が示された。安価なL-アルギニンを基質とした、麹菌或いは麹菌ADCを用いた効率的なアグマチン生産への応用が期待される。また、L-乳酸を含む様々な有機酸によりアグマチン生産が促進される事から(図6A及び7)、麹菌ADCは低pH環境下でも十分な酵素活性を発揮しうると考えられる。その様な耐酸性タンパク質は他の物理・化学ストレス(高温等)でも変性せず安定である場合が多く(Francois JA, Starks CM, Sivanuntakorn S, Jiang H, Ransome AE, Nam JW, Constantine CZ, Kappock TJ. 2006. Structure of a NADH-insensitive hexameric citrate synthase that resists acid inactivation. Biochemistry 45:13487-13499., Mullins EA, Starks CM, Francois JA, Sael L, Kihara D, Kappock TJ. 2012. Formyl-coenzyme A (CoA):oxalate CoA-transferase from the acidophile Acetobacter aceti has a distinctive electrostatic surface and inherent acid stability. Protein Sci. 21:686-696.)、アグマチンの効率的な工業生産を検討する上で、麹菌由来ADCは極めて有望な酵素剤となりうると期待される。
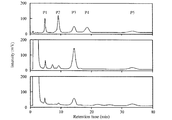
材料及び方法に記載した手法で、麹菌を用いた脱脂ゴマ粕の発酵実験を行い、培養液上清(ゴマ醪)中に蓄積するポリアミンを、HPLCにより定性・定量した。その結果、清酒用麹を用いて発酵させたゴマ醪からは約2 mMのアグマチンが検出されたのに対し、醤油用麹の場合、アグマチン量は痕跡量(0.05 mM)であった(図10)。更に、前者からは、保持時間7分の位置に未知アミンが検出された(図10A)。また、いずれのゴマ醪からも、ほぼ等量のプトレスシンが検出されたが、未知シグナルと重複しており、正確な定量は出来なかった(図10A)。上記から、蒸米以外の原料も、清酒用麹菌を用いた効率的なアグマチン生産に供試しうる事が示された。
Claims (8)
- 発酵原料及び有機酸の存在下においてpH5.5以下、かつ27〜33℃の範囲内で培養することによって、Aspergillus oryzaeにアグマチン含有生成物を発酵により産生させる工程
を含む、アグマチンの製造方法。 - 前記培養を、pH5.13以下で行う、請求項1に記載の製造方法。
- 前記培養の開始時点以後、48時間経過時点までに、培養pHが6以下となり、その時点から少なくとも48時間以上前記培養をpH6以下にて行う、請求項1に記載の製造方法。
- 前記有機酸が、乳酸、コハク酸、クエン酸、酢酸、ピルビン酸及びリンゴ酸からなる群より選択される少なくとも一種の有機酸である、請求項1〜3のいずれか一項に記載の製造方法。
- 前記発酵原料が、イネ科植物の種子、マメ科植物の種子、芋類の根及び胡麻類の種子、並びにそれらの加工品からなる群より選択される少なくとも一種の天然素材由来物、及び/又はL−アルギニンである、請求項1〜4のいずれか一項に記載の製造方法。
- 前記アグマチン含有生成物が、糖化液である、請求項1〜5のいずれか一項に記載の製造方法。
- (1)請求項6に記載の工程;及び
(2)前記糖化液を原料として用いてアルコール発酵を行い、アルコール液を得る工程を含む、アルコール液の製造方法。 - (1)請求項6に記載の工程;
(2)前記糖化液を原料として用いてアルコール発酵を行い、アルコール液を得る工程;及び
(3)前記アルコール液を原料として用いて酢酸発酵を行い、酢を得る工程を含む、酢の製造方法。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2016242522A JP6887663B2 (ja) | 2016-12-14 | 2016-12-14 | アグマチンの製造方法及びその利用 |
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2016242522A JP6887663B2 (ja) | 2016-12-14 | 2016-12-14 | アグマチンの製造方法及びその利用 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2018093805A JP2018093805A (ja) | 2018-06-21 |
| JP6887663B2 true JP6887663B2 (ja) | 2021-06-16 |
Family
ID=62631909
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2016242522A Expired - Fee Related JP6887663B2 (ja) | 2016-12-14 | 2016-12-14 | アグマチンの製造方法及びその利用 |
Country Status (1)
| Country | Link |
|---|---|
| JP (1) | JP6887663B2 (ja) |
Families Citing this family (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CN109198342A (zh) * | 2018-10-26 | 2019-01-15 | 大连悠铭屋生物科技有限公司 | 一种小米发酵甘酒营养饮品及其制备方法 |
| JPWO2022181153A1 (ja) * | 2021-02-24 | 2022-09-01 | ||
| WO2023234031A1 (ja) * | 2022-06-03 | 2023-12-07 | 東洋紡株式会社 | 皮膚機能関連因子に関する遺伝子の発現調節剤 |
Family Cites Families (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| WO1993009681A1 (fr) * | 1991-11-12 | 1993-05-27 | Kyowa Hakko Kogyo Co., Ltd. | Procede de production d'un aliment et d'une boisson |
| JP4068649B2 (ja) * | 2005-10-04 | 2008-03-26 | アサヒビール株式会社 | 黄麹菌を用いた液体麹の製造方法 |
-
2016
- 2016-12-14 JP JP2016242522A patent/JP6887663B2/ja not_active Expired - Fee Related
Also Published As
| Publication number | Publication date |
|---|---|
| JP2018093805A (ja) | 2018-06-21 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| Zhao et al. | Combined effects of fermentation temperature and Saccharomyces cerevisiae strains on free amino acids, flavor substances, and undesirable secondary metabolites in huangjiu fermentation | |
| US11198890B2 (en) | Preparation of (R)-3-hydroxybutyric acid or its salts by one-step fermentation | |
| Han et al. | The current status of biotechnological production and the application of a novel antioxidant ergothioneine | |
| Beltran et al. | Influence of the timing of nitrogen additions during synthetic grape must fermentations on fermentation kinetics and nitrogen consumption | |
| EP2368444B1 (en) | Yeast extract with high glutamic acid content and producing method thereof | |
| Hajar-Azhari et al. | Evaluation of a Malaysian soy sauce koji strain Aspergillus oryzae NSK for γ-aminobutyric acid (GABA) production using different native sugars | |
| Zhou et al. | Desired soy sauce characteristics and autolysis of Aspergillus oryzae induced by low temperature conditions during initial moromi fermentation | |
| Fashogbon et al. | Microbial gamma-aminobutyric acid synthesis: a promising approach for functional food and pharmaceutical applications | |
| JP7212001B2 (ja) | 竜舌蘭ベースのスピリッツ由来のエネルギー飲料及び他の栄養補助材料 | |
| Boonburapong et al. | Accumulation of gamma-aminobutyric acid in the halotolerant cyanobacterium Aphanothece halophytica under salt and acid stress | |
| Yan et al. | Free amino acids identification and process optimization in greengage wine fermentation and flavor formation | |
| Juodeikiene et al. | Bioconversion of agro-industrial by-products to lactic acid using Lactobacillus sakei and two Pediococcus spp. strains | |
| Xu et al. | Correlation between changes in flavor compounds and microbial community ecological succession in the liquid fermentation of rice wine | |
| Mutaguchi et al. | D-amino acids in fermentative foods | |
| JP2018093805A (ja) | アグマチンの製造方法及びその利用 | |
| Isobe et al. | Characterization of a novel hydroxynitrile lyase from Nandina domestica Thunb | |
| Lai et al. | Influence of enzyme treatment of rice bran on gamma-aminobutyric acid synthesis by Lacto bacillus | |
| Moon et al. | Characterization of ethanol fermentation waste and its application to lactic acid production by Lactobacillus paracasei | |
| Liao et al. | Salt reduction-driven biogenic amine accumulation in broad bean paste: Insights into physicochemical properties, key enzyme activity, and microbial community dynamics | |
| Takahashi | The community of lactic acid bacteria during kimoto-style seed mash making process and its control | |
| Huang et al. | Effect of pear juice concentrates on the metabolism of Saccharomyces cerevisiae during fermentation | |
| Seixas et al. | Insights into the transcriptional regulation of poorly characterized alcohol acetyltransferase-encoding genes (HgAATs) shed light into the production of acetate esters in the wine yeast Hanseniaspora guilliermondii | |
| Jiang et al. | Studies on screening of higher γ-aminobutyric acid-producing Monascus and optimization of fermentative parameters | |
| Herlina et al. | Unveiling the sociocultural, microbiological, and functional properties of liquid brem, a traditional balinese fermented rice wine: a systematic review | |
| CN112352949B (zh) | 一种微生物发酵制备富含gaba的牛蒡发酵基料的方法 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A711 | Notification of change in applicant |
Free format text: JAPANESE INTERMEDIATE CODE: A711 Effective date: 20190129 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A821 Effective date: 20190129 |
|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20191028 |
|
| A977 | Report on retrieval |
Free format text: JAPANESE INTERMEDIATE CODE: A971007 Effective date: 20200721 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20200804 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20201005 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20201208 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20210122 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20210413 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20210512 |
|
| R150 | Certificate of patent or registration of utility model |
Ref document number: 6887663 Country of ref document: JP Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| LAPS | Cancellation because of no payment of annual fees |