JP7145083B2 - 高等植物の葉緑体におけるトランス遺伝子発現を増加させるためのコドン最適化及びリボソームプロファイリング - Google Patents
高等植物の葉緑体におけるトランス遺伝子発現を増加させるためのコドン最適化及びリボソームプロファイリング Download PDFInfo
- Publication number
- JP7145083B2 JP7145083B2 JP2018568189A JP2018568189A JP7145083B2 JP 7145083 B2 JP7145083 B2 JP 7145083B2 JP 2018568189 A JP2018568189 A JP 2018568189A JP 2018568189 A JP2018568189 A JP 2018568189A JP 7145083 B2 JP7145083 B2 JP 7145083B2
- Authority
- JP
- Japan
- Prior art keywords
- codon
- protein
- optimized
- replaced
- plant
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Active
Links
Images










Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/82—Vectors or expression systems specially adapted for eukaryotic hosts for plant cells, e.g. plant artificial chromosomes (PACs)
- C12N15/8241—Phenotypically and genetically modified plants via recombinant DNA technology
- C12N15/8242—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits
- C12N15/8257—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits for the production of primary gene products, e.g. pharmaceutical products, interferon
- C12N15/8258—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits for the production of primary gene products, e.g. pharmaceutical products, interferon for the production of oral vaccines (antigens) or immunoglobulins
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/12—Viral antigens
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K9/00—Medicinal preparations characterised by special physical form
- A61K9/0012—Galenical forms characterised by the site of application
- A61K9/0053—Mouth and digestive tract, i.e. intraoral and peroral administration
- A61K9/0056—Mouth soluble or dispersible forms; Suckable, eatable, chewable coherent forms; Forms rapidly disintegrating in the mouth; Lozenges; Lollipops; Bite capsules; Baked products; Baits or other oral forms for animals
- A61K9/0058—Chewing gums
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P1/00—Drugs for disorders of the alimentary tract or the digestive system
- A61P1/02—Stomatological preparations, e.g. drugs for caries, aphtae, periodontitis
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P31/00—Antiinfectives, i.e. antibiotics, antiseptics, chemotherapeutics
- A61P31/12—Antivirals
- A61P31/14—Antivirals for RNA viruses
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/46—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans from vertebrates
- C07K14/47—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans from vertebrates from mammals
- C07K14/4701—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans from vertebrates from mammals not used
- C07K14/4723—Cationic antimicrobial peptides, e.g. defensins
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/575—Hormones
- C07K14/65—Insulin-like growth factors, i.e. somatomedins, e.g. IGF-1, IGF-2
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/745—Blood coagulation or fibrinolysis factors
- C07K14/755—Factors VIII, e.g. factor VIII C (AHF), factor VIII Ag (VWF)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N1/00—Microorganisms; Compositions thereof; Processes of propagating, maintaining or preserving microorganisms or compositions thereof; Processes of preparing or isolating a composition containing a microorganism; Culture media therefor
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/82—Vectors or expression systems specially adapted for eukaryotic hosts for plant cells, e.g. plant artificial chromosomes (PACs)
- C12N15/8201—Methods for introducing genetic material into plant cells, e.g. DNA, RNA, stable or transient incorporation, tissue culture methods adapted for transformation
- C12N15/8214—Plastid transformation
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/82—Vectors or expression systems specially adapted for eukaryotic hosts for plant cells, e.g. plant artificial chromosomes (PACs)
- C12N15/8216—Methods for controlling, regulating or enhancing expression of transgenes in plant cells
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/82—Vectors or expression systems specially adapted for eukaryotic hosts for plant cells, e.g. plant artificial chromosomes (PACs)
- C12N15/8241—Phenotypically and genetically modified plants via recombinant DNA technology
- C12N15/8242—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits
- C12N15/8257—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits for the production of primary gene products, e.g. pharmaceutical products, interferon
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N7/00—Viruses; Bacteriophages; Compositions thereof; Preparation or purification thereof
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/24—Hydrolases (3) acting on glycosyl compounds (3.2)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/24—Hydrolases (3) acting on glycosyl compounds (3.2)
- C12N9/2402—Hydrolases (3) acting on glycosyl compounds (3.2) hydrolysing O- and S- glycosyl compounds (3.2.1)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/24—Hydrolases (3) acting on glycosyl compounds (3.2)
- C12N9/2402—Hydrolases (3) acting on glycosyl compounds (3.2) hydrolysing O- and S- glycosyl compounds (3.2.1)
- C12N9/2405—Glucanases
- C12N9/2408—Glucanases acting on alpha -1,4-glucosidic bonds
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/14—Hydrolases (3)
- C12N9/24—Hydrolases (3) acting on glycosyl compounds (3.2)
- C12N9/2402—Hydrolases (3) acting on glycosyl compounds (3.2) hydrolysing O- and S- glycosyl compounds (3.2.1)
- C12N9/2405—Glucanases
- C12N9/2451—Glucanases acting on alpha-1,6-glucosidic bonds
- C12N9/2454—Dextranase (3.2.1.11)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y302/00—Hydrolases acting on glycosyl compounds, i.e. glycosylases (3.2)
- C12Y302/01—Glycosidases, i.e. enzymes hydrolysing O- and S-glycosyl compounds (3.2.1)
- C12Y302/01084—Glucan 1,3-alpha-glucosidase (3.2.1.84), i.e. mutanase
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/54—Medicinal preparations containing antigens or antibodies characterised by the route of administration
- A61K2039/541—Mucosal route
- A61K2039/542—Mucosal route oral/gastrointestinal
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/545—Medicinal preparations containing antigens or antibodies characterised by the dose, timing or administration schedule
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/555—Medicinal preparations containing antigens or antibodies characterised by a specific combination antigen/adjuvant
- A61K2039/55511—Organic adjuvants
- A61K2039/55566—Emulsions, e.g. Freund's adjuvant, MF59
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/555—Medicinal preparations containing antigens or antibodies characterised by a specific combination antigen/adjuvant
- A61K2039/55511—Organic adjuvants
- A61K2039/55577—Saponins; Quil A; QS21; ISCOMS
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/57—Medicinal preparations containing antigens or antibodies characterised by the type of response, e.g. Th1, Th2
- A61K2039/575—Medicinal preparations containing antigens or antibodies characterised by the type of response, e.g. Th1, Th2 humoral response
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/60—Medicinal preparations containing antigens or antibodies characteristics by the carrier linked to the antigen
- A61K2039/6031—Proteins
- A61K2039/6037—Bacterial toxins, e.g. diphteria toxoid [DT], tetanus toxoid [TT]
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K2319/00—Fusion polypeptide
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2770/00—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA ssRNA viruses positive-sense
- C12N2770/00011—Details
- C12N2770/32011—Picornaviridae
- C12N2770/32611—Poliovirus
- C12N2770/32634—Use of virus or viral component as vaccine, e.g. live-attenuated or inactivated virus, VLP, viral protein
-
- Y—GENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y02—TECHNOLOGIES OR APPLICATIONS FOR MITIGATION OR ADAPTATION AGAINST CLIMATE CHANGE
- Y02A—TECHNOLOGIES FOR ADAPTATION TO CLIMATE CHANGE
- Y02A50/00—TECHNOLOGIES FOR ADAPTATION TO CLIMATE CHANGE in human health protection, e.g. against extreme weather
- Y02A50/30—Against vector-borne diseases, e.g. mosquito-borne, fly-borne, tick-borne or waterborne diseases whose impact is exacerbated by climate change
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Genetics & Genomics (AREA)
- Organic Chemistry (AREA)
- Engineering & Computer Science (AREA)
- Zoology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Wood Science & Technology (AREA)
- General Health & Medical Sciences (AREA)
- Molecular Biology (AREA)
- Biotechnology (AREA)
- Medicinal Chemistry (AREA)
- Biomedical Technology (AREA)
- General Engineering & Computer Science (AREA)
- Biochemistry (AREA)
- Microbiology (AREA)
- Biophysics (AREA)
- Pharmacology & Pharmacy (AREA)
- Veterinary Medicine (AREA)
- Virology (AREA)
- Physics & Mathematics (AREA)
- Cell Biology (AREA)
- Plant Pathology (AREA)
- Animal Behavior & Ethology (AREA)
- Public Health (AREA)
- Immunology (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Gastroenterology & Hepatology (AREA)
- Toxicology (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- General Chemical & Material Sciences (AREA)
- Epidemiology (AREA)
- Diabetes (AREA)
- Endocrinology (AREA)
- Oncology (AREA)
- Communicable Diseases (AREA)
- Hematology (AREA)
- Mycology (AREA)
Description
前述の概要及び以下の詳細な説明は、いずれも例示的及び説明的なものに過ぎず、本教示の範囲を限定する意図はないことが理解されるべきである。本願においては、特に具体的に明記されない限り、単数形の使用が複数形を含む。例えば、「少なくとも1つ」は、2つ以上が存在し得ることを意味する。また、「~を含む(comprise)」、「~を含む(contain)」、及び「~を含む(include)」、又はこれらの語幹を持つ単語の変化形、例えば限定はされないが、「~を含む(comprises)」、「~を含んだ(contained)」、及び「~を含んでいる(including)」の使用は、限定を意図するものでなく、「以下の要素を含むが、他の要素を除外しない」ことを意味する。
Tm=81.5℃-16.6(log10[Na+])+0.41(%G+C)-0.63(%ホルムアミド)-600/l)、
[式中、l=塩基対単位でのハイブリッドの長さ]
を用いて計算することができる。
葉緑体における異種遺伝子の発現を最大化するため、133の種子植物種にわたるpsbA遺伝子のコドン優先度に基づき葉緑体コドン最適化プログラムを開発した。配列は全て、国立バイオテクノロジー情報センター(National Center for Biotechnology Information:NCBI、ncbi.nlm.nih.gov/genomes/GenomesGroup.cgi?taxid=2759&opt=plastid)からダウンロードした。133個のpsbA遺伝子からの合計46,500個のコドンを分析することにより、各アミノ酸について同義コドン間での使用優先度を決定した。JAVAを用いて最適化アルゴリズム(クロロプラスト・オプティマイザー(Chloroplast Optimizer)v2.1)を作製し、レアコドンから葉緑体で高頻度に使用されるコドンへの変更を促進した。
pAAV-TTR-hF8-ミニプラスミド(Sherman et al.,2014)をPCR鋳型として使用して、FVIII重鎖(HC)の天然配列を増幅した。コドン・オプティマイザー(Codon Optimizer)v2.1を使用して得たコドン最適化HC配列がGenScript(Piscataway、NJ、USA)によって合成された。本発明者らはまた、FVIII軽鎖(LC)、IFG-1及びムタナーゼも最適化した。セービン1(Konstantin Chumakov博士、FDAより供与いただいた)の天然VP1遺伝子(906bp)をPCR増幅の鋳型として使用した。コドン最適化VP1配列もまたGenScriptによって合成された。増幅した合成の遺伝子配列をそれぞれラクツカ・サティバ(Lactuca sativa)及びプティ・ハバナ(Petit Havana)の葉緑体形質転換ベクターpLSLF及びpLD-utrにクローニングした。以前記載のとおり(Verma et al.,2008)、配列が確認されたプラスミドをボンバードメントに使用してトランスプラストミック植物を作出した。サザンブロット分析を用いたトランスプラストミック系統の確認を以前記載のとおり行い(Verma et al.,2008)、但しプローブ標識及び検出については、DIG high prime DNA標識及び検出スターターキットII(Roche、カタログ番号11585624910)を使用した。
天然配列とコドン最適化配列との間でタンパク質発現レベルを比較するため、抗CNTB抗体を用いてイムノブロット及びデンシトメトリーアッセイを実施した。1×PBS及び5mM EDTA中に再懸濁した大腸菌(E.coli)細胞を超音波処理することにより、大腸菌(E.coli)から全タンパク質を抽出した。全植物タンパク質については、粉末化した凍結乾燥植物細胞を抽出緩衝液(100mM NaCl、10mM EDTA、200mMトリス-Cl pH8.0、0.05%(v/v)Tween-20、0.1%SDS、14mM β-ME、400mMスクロース、2mM PMSF、及びプロテイナーゼ阻害薬カクテル)中に500μL当たり10mgの比率で懸濁し、氷上で1時間インキュベートして再水和させた。懸濁細胞をボルテックス(約30秒)後に超音波処理した(パルスオン5秒及びパルスオフ10秒、ソニケーター3000、Misonix)。ブラッドフォードアッセイの後、等量のホモジナイズしたタンパク質を既知量のCNTBタンパク質標準と共にSDS-ポリアクリルアミドにロードし、分離した。CNTB融合タンパク質を検出するため、抗CNTBポリクローナル抗体(GenWay Biotech Inc.、San Diego、CA)を1×PBST(0.1%Tween-20)中に1:10,000希釈し、次に、1×PBST中に1:4,000希釈したヤギ抗ウサギIgG-HRP二次抗体(Southern Biotechnology、4030-05)で膜をプローブした。化学発光シグナルをX線フィルム上に現像し、これを使用してImage Jソフトウェア(IJ 1.46r;NIH)で定量分析を行った。
組織培養室内の寒天培地で生育した植物の葉からeasy-BLUE(商標)全RNA抽出キット(iNtRON、カタログ番号17061)を使用して全RNAを抽出した。RNAゲルブロットについては、等量の全RNA(4μg)を0.8%アガロースゲル(1.85%ホルムアルデヒド及び1×MOPS含有)上で分離し、ナイロン膜(Nytran SPC;Whatman、Buckinghamshire、UK)にブロットした。ノーザンブロットについては、葉緑体形質転換プラスミドのpsbA 5’又は3’UTR領域からのPCR増幅産物をプローブとして使用した。上記に記載したとおりDIG標識及び検出キットを使用して膜上のハイブリダイゼーションシグナルを検出した。
確認されたホモプラスミック系統を温度及び光が制御された温室に移した。完全に成長したトランスプラストミック植物の成葉を採取し、凍結乾燥まで-80℃で貯蔵した。-植物葉材料をフリーズドライするため、3日間にわたりチャンバ温度を-40℃から25℃に上昇させながら、凍結して砕いた小さい葉片を400mTorr真空下で昇華させた(Genesis 35XL、VirTis SP Scientific)。コーヒーグラインダー(Hamilton Beach)を最高速度で使用して、脱水した葉を粉末化し、タバコは3回、各10秒間粉砕し、及びレタスは3回、5秒間粉砕した。粉末化した葉をシリカゲルと共に室温で気密・無水条件下に容器内に貯蔵した。
10mgの凍結乾燥葉粉末から、1mL抽出緩衝液(2%SDS、100mM DTT、20mM TEAB)を加えることによって全タンパク質を抽出した。凍結乾燥葉粉末を時々ボルテックスしながら室温で30分間インキュベートすることにより、植物細胞を再水和させた。次にホモジネートを70℃で1時間インキュベートし、続いて常時回転させながら室温で一晩インキュベーションした。14,000rpm(約20,800rcf)で遠心することにより細胞壁/細胞膜デブリをペレット化した。この手順はデュプリケートで実施した。
33.3μgの凍結乾燥葉粉末から抽出及び消化した全タンパク質の量に対応する、34fmolの各SISペプチドをスパイクインした2μLのペプチドをカラムに注入することにより、液体クロマトグラフィーと組み合わせたターゲット質量分光分析を実施した。Easy-nLC 1000(Thermo Scientific)を使用して自作の30cm×75μm内寸C18カラム(1.9μm粒径、ReproSil、Dr.Maisch HPLC GmbH)でペプチドを分離した。移動相は、両方ともにHPLCグレード(Fluka)の、0.1%ギ酸(A)及び90%アセトニトリル及び0.1%ギ酸(B)の水溶液からなった。4%溶媒Bの水溶液でカラムにペプチドを250nL/分でロードした。4-7-27-36-65-80%Bについて非直線グラジエントをそれぞれ2-50-10-10-5分間適用することによりペプチドを溶出させた。
植物の上から2番目及び3番目の葉をリボソームプロファイリング用に採取した。レタス植物は約2ヵ月齢であった。タバコ植物は、天然及びコドン最適化VP1コンストラクトについてそれぞれ2.5又は2ヵ月齢であった。葉は正午に採取し、液体窒素で急速凍結した。Zoschke et al(2013)に記載されるとおり、但しミクロコッカスヌクレアーゼの代わりにリボヌクレアーゼIを用いて、リボソームフットプリントを調製した。NEXTflex Illumina Small RNAシーケンシングキットv2(BIOO Scientific、5132-03)でリボソームフットプリントをシーケンシングライブラリに変換した。パイロット実験で観察された大量のrRNA夾雑物に対応するビオチン化オリゴヌクレオチドを用いて第1鎖cDNA合成後にサブトラクティブハイブリダイゼーションによってrRNA夾雑物を除去した。試料をオレゴン大学ゲノミクスコア施設(University of Oregon Genomics Core Facility)でシーケンシングした。配列リードをcutadaptによって処理してアダプター配列を除去し、デフォルトパラメータのbowtie2でリードを改変葉緑体ゲノム配列とアライメントした。
フォワードプライマー5’-gggCCCgggCCCCggCgTAAACgCTCTgTTgggTTAggTCAgATg-3’及びリバースプライマー5’-CgATCTAgATCAATATgTggTCAgATC-3’を使用してセービン1型ポリオウイルス(Konstantin Chumakov博士、FDAより供与いただいた)の天然VP1遺伝子(906bp)を増幅した。PCR増幅断片及びコドン最適化VP1遺伝子(GenScript、Piscataway、NJ、USAによって合成された)をタバコ及びレタス葉緑体形質転換ベクターにクローニングした。葉緑体形質転換ベクターの微粒子銃送達並びにトランスプラストミックタバコ(ニコチアナ・タバカム品種プティ・ハバナ(Nicotiana tabacum cv.Petit Havana))及びレタス(ラクツカ・サティバ品種シンプソン・エリート(Lactuca sativa cv.Simpson Elite))系統の再生を以前記載のとおり実施した(Ruhlman et al.,2007;Verma et al.,2008)。
葉緑体ゲノムへのトランス遺伝子カセットの組込みを確認するため、タバコ及びレタスについてそれぞれプライマー対3P/3M及び5P/2M又は16S-Fw/3M及び5P/2Mを使用してPCRを実施した(Verma et al.,2008;Kanagaraj et al.,2011)。以前記載のとおりサザンブロット分析を実施してトランス遺伝子の組込み及びホモプラスミーを確認した(Verma et al.,2008)。
既発表の方法(Davoodi-Semiromi et al.,2010)に従いCTB-VP1融合タンパク質のイムノブロット分析及び定量化を実施した。CTB-VP1融合タンパク質を検出するため、ブロットを1:10,000ウサギ抗CTBポリクローナル抗体(GeneWay、San Diego、CA、USA)又は1:1,000ウサギ抗VP1ポリクローナル抗体(Alpha Diagnostic Intl.Inc.、San Antonio、TX、USA)、続いて二次抗体として1:4,000ヤギ抗ウサギIgG-HRP(SouthernBiotech、Birmingham、AL、USA)と共にインキュベートした。CTB(Sigma、St Louis、MO、USA)及び組換えセービン1 VP1(Alpha Diagnostic Intl.Inc.、San Antonio、TX、USA)を陽性対照として使用した。葉緑体由来CTB-VP1融合タンパク質を精製するため、His60 Ni Superflow Resin(Clontech Laboratories、Mountain View、CA、USA)を製造者の指示に従い使用した。溶出した画分を滅菌リン酸緩衝生理食塩水(PBS)で3回透析し、アリコートに分け、-20℃で保存した。精製した葉緑体由来CTB-VP1を免疫グロブリン測定に使用した。
タバコ葉緑体由来CTB-VP1が五量体を形成してGM1ガングリオシド受容体に結合する能力を試験するため、記載されるとおりCTB-GM1結合アッセイを実施した(Davoodi-Semiromi et al.,2010)。
Charles River Laboratories(Wilmington、MA、USA)から6~7週齢の雌CD-1マウスを購入し、マイクロアイソレーターケージで飼育した。実験はペンシルベニア大学動物実験委員会(University of Pennsylvania Institutional Animal Care and Use Committee)の指針に従い行った。マウスを1群当たり10匹のマウスの9群に無作為に分けた。群1は対照群とし、マウスは処置を受けなかった。群2~8のマウスは全て、3種類のポリオウイルス(1型(マホーニー)、2型(MEF-1)、及び3型(ソウケット)(IPOL、Sanofi Pasteur SA))の100μlのIPV懸濁液で皮下的に(s.c.)プライミングした。群2のマウスはプライミングの30日後に同じIPVでs.c.ブーストした。群3~9のマウスは凍結乾燥した植物材料で経口的にブーストした:群3~8のマウスは、プライミングの1週間後から開始して8週連続で週1回ブーストした。群3~5のマウスは、凍結乾燥した天然CTB-VP1発現葉で経口的にブーストした;各マウスは、200μlのPBS+種々のアジュバント:サポニン(群3)、スクアレン(群4)又は両方(群5)中20mgの材料でブーストした。群6~9のマウスは、凍結乾燥したコドン最適化CTB-VP1発現葉で経口的にブーストした;各マウスは、200μlのPBS+種々のアジュバント:サポニン(群6)、スクアレン(群7)又は両方(群8及び9)中20mgの材料でブーストした。プライミングの1日前及びブースティングの7日後に血液を採取した。血清試料は56℃で30分間熱失活させて補体活性を破壊した。
ワクチン製剤化は、概して以前記載のとおり39、40、但し変更を加えて実施した。簡潔に言えば、ダブルエマルション法を用いてワクチン製剤を調製した。スクアレンをアジュバントとするVP1抗原を調製するため、PBS中0.05%Tween-80を20mgの凍結乾燥VP1抗原と混合することにより水相中の一次エマルションを作製した。油相はスクアレン(80%v/v)とSpan-80(Sigma、P4780)(20%v/v)との組み合わせであった。エマルションは、一次油性エマルションを水相と混合し、マウス当たり総容積200μlとなるようにPBSで調整した後、5,000rpmで5分間ホモジナイズすることにより作製した。
VP1特異的IgG1及びIgA力価の血清レベルを含めた免疫応答をダイレクトELISA及びインビトロポリオウイルスセービン1、2及び3中和アッセイによってアッセイした(これらは疾病管理予防センター(Centers for Disease Control and Prevention:CDC)によって実施された)。簡潔に言えば、抗体反応アッセイのため、10μg/ml精製CTB-VP1タンパク質を使用して96ウェルMaxisorp ELISAプレート(Nunc)を4℃で一晩コーティングした。プレートを0.05%Tween含有のPBS中1%BSA(Sigma 7906)でブロックした。1:400希釈から開始して、個々の熱失活血清試料の2倍希釈物を4℃で一晩インキュベートした。二次抗体は、ブロッキング緩衝液で希釈したHRPコンジュゲートラット抗マウスIgG1(BD Pharmingen、559626、1:1,000)及びHRPコンジュゲートヤギ抗マウスIgA(American Qualex、A138N、1:5,000)であり、37℃で1時間インキュベートし、続いてTMB基質(ES001、EMD Millipore、CA)によって室温で10分間発色させた。100μlの2N硫酸を各ウェルに加えることにより反応を停止させて、450nmでELISAリーダーを用いて吸光度を測定した。抗体力価は、カットオフを上回る最も高い希釈度の逆数として定義し、カットオフはバックグラウンド平均値の3倍であった41。血清試料は全てトリプリケートで試験した。結果は個々の抗体力価±SEMとして示す。
サポニン及び/又はスクアレンをアジュバントとした天然又はコドン最適化CTB-VP1タンパク質による、又は群2についてはプライミング及びブースティングの両方ともにIPVによる10回目の経口ブースト後、以前記載のとおり21、42のCDCでの後の中和アッセイのため血清試料を採取し、-80℃で保存した。簡潔に言えば、血清試料は、セービン株1型、2型、及び3型に対する抗体の変法マイクロ中和アッセイを用いてトリプリケートで試験した。対照群及び実験群からの血清試料を無作為盲検的に試験した。ウイルス中和が検出されなかった時点における力価の逆数の血清希釈度を2.5のlog2(力価)、又は陰性として記録した;≧3のlog2力価を防御的と見なした。各マウスの個々の力価をプロットし、バーは中和力価平均値±SEMを表す。
全てのデータは個々のマウスについて報告し、各群の平均値±SEMを提示する。群間の抗体力価の統計的に有意な差に関する分析はスチューデントt検定を用いて実施し(GraphPad Prism バージョン6)及びP値<0.05を有意と見なした。
ゲノミクス、プロテオミクス及びリボソームプロファイリングツールを用いた天然及びコドン最適化ヒト又はウイルス遺伝子の比較分析は葉緑体におけるトランス遺伝子発現の理解を高める
ヒト/ウイルストランス遺伝子のコドン最適化
葉緑体によるコドン使用の違いは、多くの場合に翻訳の低下と関連付けられる。治療的に関連性のあるタンパク質の発現を増加させるため、先行研究が例えばFVIIIについて<0.005%及びVP1について約0.1%の極めて低い発現レベルを明らかにしたことに伴い、ヒトの血液凝固第VIII因子重鎖(FVIII HC及びFVIII LC)、及びIGF-1、ポリオウイルスのウイルスカプシドタンパク質1(VP1)及び細菌のムタナーゼの天然配列を分析した。psbA遺伝子は葉緑体において最も高発現の遺伝子であるため、133の植物種のpsbA遺伝子で使用されるコドンの分析に基づき、アルゴリズムを用いて翻訳を増加させるためのコドン最適化ソフトウェアを開発した(図1)。psbA遺伝子の翻訳効率はrbcL遺伝子より200倍超高いため、この遺伝子を最適化に選択した(Eibl et al.,1999)。更に、葉緑体で発現する140個のトランス遺伝子のうち75%超がpsbA調節配列を使用する。図1に示されるとおりのその使用頻度に従い各アミノ酸の同義コドンを順位付けした。従って、異種遺伝子のレアコドンのほとんどが、コドン最適化プログラムによってpsbA遺伝子で使用されるコドンに従い変更された。コドン最適化プログラムの開発においては、本発明者らはまた、各アミノ酸について最も高い優先度のコドンのみを使用する合成遺伝子の発現についても調べた。
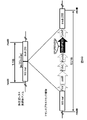
本研究では、新規に開発した葉緑体コドン最適化器を用いてFVIII HC(2262bp)、FVIII LC及びFVIIISCc(コドン最適化FVIII重鎖(Bドメインからの14アミノ酸を含むHC)と軽鎖(LC)との融合形態(図2A及び図2E)及びVP1(図4A)(906)の天然配列をコドン最適化し、合成した。コドン最適化後、FVIII HCのAT含量が56%から62%へとやや増加し、754アミノ酸中383個のコドンが最適化された。セービン1のVP1配列については、906bp長の天然配列をコドン最適化し、これによりAT含量が51.98%から59.03%へとやや増加し、302アミノ酸中187個のコドンが最適化された。合成遺伝子カセットを葉緑体形質転換ベクター、レタスについてはpLSLF又はタバコについてはpLD-utrに挿入した(図2A及び図4A)。腸上皮細胞に存在するモノシアロテトラヘキソシルガングリオシド受容体(GM1)を介した融合タンパク質の効率的な粘膜送達に使用されるコレラ非毒性Bサブユニット(CNTB)に天然及び合成遺伝子を融合した。2つのタンパク質の融合によって立体障害が引き起こされる可能性を排除し、及びインターナリゼーション後に繋留されたタンパク質の循環中への放出を促進するため、CNTBと融合タンパク質との間にヒンジ(Gly-Pro-Gly-Pro)及びフューリン切断部位(Arg-Arg-Lys-Arg)のヌクレオチド配列を操作した。コドン最適化の特異的評価のため、これらの融合遺伝子は同一のpsbAプロモーター、5’UTR及び3’UTR下に置いた(図2A及び図4A)。形質転換体の選択のため、アミノグリコシド-3”-アデニリルトランスフェラーゼ遺伝子の遺伝子(aadA)をリボソームRNAプロモーター(Prrn)によってドライブして、形質転換細胞にスペクチノマイシン耐性を付与した。内因性葉緑体ゲノム配列と同一であるイソロイシル-tRNAシンテターゼ(trnI)及びアラニル-tRNAシンテターゼ(trnA)遺伝子の配列が発現カセットに隣接し、効率的な二重相同組換え及びフランキング配列を有するイントロンの最適なプロセシングにつながった。
大腸菌(E.coli)における合成配列の発現の向上を確認した後、合成FVIII HC及びVP1配列を含む形質転換ベクターを使用して、コドン最適化HC及びVP1を発現するトランスプラストミックレタス及びタバコ植物を作出した。ホモプラスミーを確認するため、天然及びコドン最適化FVIII HCを発現する4つの独立したレタス及びタバコ系統、及び天然及びコドン最適化VP1を発現する系統でサザンブロット分析を実施した。CNTB-FVIII HC天然及びコドン最適化配列を発現するレタス植物については、葉緑体ゲノムDNAをHindIIIによって消化し、フランキング領域にわたる消化標識プローブでプローブした(図2D)。CNTB-HVIII HC(コドン最適化)を発現するタバコ植物については、AflIIIを用いてゲノムDNAを消化した。選択された全ての系統が、予想された個別的なハイブリダイゼーション断片を示し、形質転換されなかった断片はなかった(図3A)。図4Aに示すコンストラクトによってコードされるCNTB-VP1を発現するタバコ植物の場合、4つの独立したトランスプラストミック系統から抽出した全ゲノムDNAをAflIIIによって消化し、フランキング配列でプローブすると、2つの個別的なハイブリダイゼーション断片が示され、形質転換されなかった4.4kb断片はなかった。従って、これらのデータから、全てのトランスプラストミック系統のホモプラスミーが確認され、従ってトランス遺伝子コピー数でなく、その発現レベルが翻訳効率に直接関係するはずである。
コドン最適化及び天然遺伝子配列の発現レベルもまたPRM質量分析法を用いて定量化した(図6A~図6C)。CNTB及びFVIII HC配列のPRM分析に最適なプロテオタイプのペプチドを選択するため、本発明者らは初めに、CNTB-FVIII HCを発現するレタス植物のトリプシン消化物の標準MS/MS分析を実施した(データは示さず)。この実験から、本発明者らはCNTBからの3つのペプチド(ペプチド1、IFSYTESLAGK(配列番号5);ペプチド2、IAYLTEAK(配列番号6);ペプチド3、LCVWNNK(配列番号7)及び3つのFVIII HCトリプシンペプチド(ペプチド4、FDDDNSPSFIQIR(配列番号8);ペプチド5、WTVTVEDGPTK(配列番号9);ペプチド6、YYSSFVNMER(配列番号10)を選択した。これらの3つのCNTBトリプシンペプチド及び3つのFVIII HCトリプシンペプチドのPRM測定の結果として、コドン最適化植物のFVIII HCタンパク質の含量を計算した(図6A~図6B)。コドン最適化レタス植物のFVIII HCタンパク質の含量(Tcontent)は、天然配列を発現するレタス植物と比べて5.6倍高かった(図7A)。CTBから選択されたペプチドは、天然コンストラクトとコドン最適化コンストラクトとの間で4.9(IAYLTEAK)(配列番号6)~5.2(IFSYTESLAGK)(配列番号5))~6.6(LCVWNNK)(配列番号7)の範囲の変化倍数を示した。FVIII HCから選択されたペプチドは、5.5(FDDDNSPSFIQIR)(配列番号8)~5.7(YYSSFVNMER)(配列番号10)~7.1(WTVTVEDGPTK)(配列番号9)(図7A)の範囲を示した。これらの結果は表1に報告する。定量化範囲の直線性もまた決定した(データは示さず)。これらの6つのペプチド全てについて、本発明者らは0.98を超えるR2値を観察した。

リボソームプロファイリングは、ディープシーケンシングを用いて「リボソームフットプリント」-外因性ヌクレアーゼの攻撃からリボソームによって保護されるmRNA断片をマッピングする。この方法は、インビボでリボソームによって占有されるmRNAセグメントのゲノムワイドな高分解能の定量的スナップショットを提供する(Ingolia et al.,2009)。全体的なリボソームフットプリントカバレッジが、翻訳アウトプットの推定を提供することができ、及びリボソームが減速又は失速する位置は、リボソーム占有率が特に高い領域を特徴とする。
大腸菌(E.coli)と葉緑体とのコドン使用は同様でない
コドン最適化FVIII HC、LC及びSC配列は大腸菌(E.coli)における発現レベルを7~10倍向上させた。ホモプラスミック系統(全ての葉緑体ゲノムの形質転換)をサザンブロットによって確認した。コドン最適化CTB-FVIII重鎖(100kDa)、軽鎖(92kDa)及び単鎖(179kDa)の最も高いレベルの発現レベルは、凍結乾燥植物細胞でそれぞれ2440、160及び230μg/gであった。単鎖レタスでは、発現レベルは26日齢から48日齢で150μg/gから230μg/gに増加した。合成遺伝子の翻訳効率について、葉緑体は原核生物起源であるため、初めに大腸菌(E.coli)発現系で試験した。しかしながら、合成VP1遺伝子の発現は、天然遺伝子よりも僅か3倍高いことを示したに過ぎなかった。合成VP1の翻訳レベルがFVIII HCよりも低いのは、大腸菌(E.coli)と葉緑体との間でまれにしか使用されないコドンに違いがあるためであり得る。大腸菌(E.coli)では、6つのアルギニンコドンのうち4つ(AGG、AGA、CGG及びCGA)のコドンの優先度が低い。また、グリシンのGGA、イソロイシンのAUA、ロイシンのCUA、及びプロリンのCCC(Kane,1995)は、大腸菌(E.coli)で最も優先度が低いコドンである。通常、少数のレアコドンが翻訳に重大な障害を引き起こすことはない。しかしながら、多数のレアコドンがクラスター化すると、翻訳に影響する。アルギニンコドンAGG/AGAについては、大腸菌(E.coli)におけるタンパク質発現に対するその有害効果が広く研究されてきた。AGGコドンのタンデムリピートの程度が異なる試験タンパク質を使用した研究では、AGGクラスターの数が2から5になると、翻訳は大幅に低下した(Rosenberg et al.,1993)。天然VP1についてはレアコドンのクラスター化の問題はないが、FVIII HCの天然配列は3つのクラスター化部位を有し、そこにアルギニン又はグリシンのレアコドンが連続的に、例えばコドン3及び4(AGA-AGA)、コドン489及び499(AGG-AGA)、及びコドン562及び563(AGA-GGA)に置かれていることが分かった。従って天然FVIII HC配列からコドン最適化によってまれなArgコドンの多重リピートを除去すれば、大腸菌(E.coli)における合成HCの翻訳が増加し得る。対照的に、VP1の天然配列はかかるレアコドンのタンデムリピートを有しないため、FVIII HC天然配列と比べて発現効率への影響は小さかった。これらのデータを踏まえると、食用レタスを使用したFVIII SC凝固因子の作製及び経口送達が、費用対効果の高い安全な方法で、コンプライアンスが向上した患者に有益となるであろうことは明らかである。cGMP施設における治療用植物葉の大規模な/臨床グレードの生産は、大型動物モデル、非ヒト霊長類における植物製凝固因子の評価を強化し、及び毒性研究を促進するであろう。
葉緑体における天然VP1とコドン最適化VP1との間の22.5~28.0倍(PRMによる)及び46~48倍(WBによる)の増加はかなり顕著である。コドン最適化器Codon Optimizerは葉緑体における異種遺伝子の発現を最適化するように設計したため、葉緑体における天然配列と合成配列との間での発現レベルの向上は大腸菌(E.coli)における発現と比べてはるかに大きいことが予想される。例えば、ロイシンのCUAは大腸菌(E.coli)ではまれにしか使用されないが、同じコドンが葉緑体では最も選好して使用される。コドン最適化プログラムは6つのロイシンコドンのうちCUAの割合をVP1の天然配列の27.8%からコドン最適化配列の38.9%に増加させた。大腸菌(E.coli)での発現と対照的に、天然配列及びコドン最適化配列を発現するVP1植物間のタンパク質レベルの倍数差は、FVIII HCを発現する植物における天然配列とコドン最適化配列との間のその倍数差と比べて大きかった。FVIIIの分子量(754アミノ酸)がVP1(302アミノ酸)よりも高いため、葉緑体においてより多くのtRNA及びアミノ酸が必要であることを所与とすれば、得られたタンパク質合成は効率が低いことになる。葉緑体は外来性タンパク質を合成及び蓄積する能力が極めて高いことを考えると、窒素供給及びアミノ酸プールが組換えタンパク質の蓄積にとって大きな関心事であり得る。既報告に見られるとおり(Bally et al.,2009)、タンパク質合成資源の制限に起因した常在タンパク質、特にルビスコ(通常は主要な葉アミノ酸貯蔵タンパク質として機能する)の減少に伴い、トランスプラストミック植物の全アミノ酸含量が大きい影響を受けた。
大きな課題は、多量体構造体の凝集又は形成に起因して唯一の信頼性の高い方法(ELISA)を用いることができないため、不溶性タンパク質を定量化する信頼性の高い方法がないことである。しかしながら、タンパク質薬物の正確な用量の送達は、その臨床使用に向けた基本的な要件である。従って、この研究で本発明者らは、コドン最適化配列及び天然配列を担持する植物におけるCNTB-FVIII HC及びCNTB-VP1の絶対定量化のため並列反応モニタリング(PRM)分析を行った。PRM分析は、その高い感度、特異度、及び複合的タンパク質マトリックス内の特異的タンパク質標的の正確な定量化により、例えば血漿中のバイオマーカーの発見など、定量的プロテオミクス研究において広く利用されている(Gallien et al.,2012)。これらの性質は、タンパク質マトリックス供給源(例えばタバコ又はレタスからの植物抽出物)又は複雑さとは無関係の、特異的タンパク質標的の定量化にPRMを用いることの利点を明らかに示している。更に、少数のタンパク質用のPRMアッセイの開発を比較的短期間及び低コストで実現することができる(MS機器は考慮に入れない)。ペプチド主体の定量化方法論はまた、タンパク質抽出方法のロバスト性及び多用途性ももたらすため、目的タンパク質を天然のコンホメーションに保つことは必須ではない。しかしながらこれは、消化に使用される酵素の酵素切断部位へのアクセスにより本質的にバイアスを受ける。このバイアスを解消するため、本発明者らは強力な変性条件(即ち2%SDS)及びタンパク質分解酵素の活性に有利な緩衝液(即ちデオキシコール酸ナトリウム系緩衝液)(Leon et al.,2013)を使用している。FVIII HC(図6及び図7)については、天然配列と比べたコドン最適化配列の増加倍数の値に有意なばらつきはなく、それは定量化に選択したペプチドによって決まった。CNTB領域(融合タンパク質のN末端)から選択された3つのペプチドは、増加倍数の範囲が4.9~6.4であったことを示したが、この範囲はFVIII領域(融合タンパク質のC末端)から選択されたペプチドについては5.3~7.1であった。従ってPRM分析から得られた定量化結果は、融合タンパク質の選択領域(N末端か、それともC末端か)又は構成タンパク質(CNTBか、それともFVIII HCか)とは無関係に一貫している。また、CNTBVP1の同じ3つのCNTBペプチドは、増加倍数が22.5~28.0の範囲で一貫していることを示した。PRM分析は、異なるサイズのタンパク質の移動度及びトランスファー並びに抗体プローブの飽和度によりもたらされるばらつきを排除したため、ウエスタンブロットより優れている。総じて、PRMワークフローは第一にCNTB及びFVIII HC配列からのプロテオタイプペプチドの選択;及びカウンターパートSISペプチドの合成からなった。6つのペプチドが選択され、これらのペプチドの二重及び/又は三重荷電状態の質量電荷比(m/z)及びウィンドウ±5分としたクロマトグラフィーで観察された保持時間(RT)に基づき、Qexactive質量分析計でのPRM分析のスケジュールが組まれた。プレカーサーイオンの選択を目標とするこの二重の方法が、Qexactive MSの高分解能に加え、アッセイの高い特異度に寄与する。取得後のPRMデータ分析もまた、アッセイに高い特異度を付与する。次に、マトリックスからの明らかな夾雑物の寄与がない、5つの最も高強度のフラグメントイオンが、ペプチドの定量化に選択される。最後に、使用するバイオインフォマティクスツール、即ちSkyline(MacLean et al.,2010)によるフラグメントイオンのアサインの信頼性が、カウンターパートSISペプチドの各々で生成された参照MS/MSスペクトル及びRTプロファイルの比較によって実現する。PRMの高い感度、特異度、多用途性及びロバスト性は、植物における翻訳システムを特徴付ける新たな機会を提供する。
葉緑体における有益なバイオ医薬品の合成に関する我々の理解を促進するため、葉緑体ゲノム配列、リボソームプロファイリング及びターゲット質量分析法(MS)を利用して異種遺伝子発現を分析した。質量分析法によるターゲットプロテオーム定量化により、コドンを最適化すると翻訳効率がコード配列基準で5~50倍増加することが示され、この手法が植物細胞におけるタンパク質薬物投与量の定量化に初めてバリデートされた。多量体構造体の凝集又は形成に起因して不溶性タンパク質を定量化する信頼性の高い方法がないことが、大きな課題である。本研究に使用したバイオ医薬品は両方ともCNTB融合タンパク質であり、腸上皮GM1受容体へのその結合の要件である五量体を形成するものである。かかる多量体構造体のため、投与量の定量化に関して一般的に用いられるELISAは排除された。しかしながら、タンパク質薬物の正確な用量の送達は、その臨床使用に向けた基本的な要件であり、本研究ではこの重要な目標が達成された。実際、本研究で作成された植物バイオマスは、疾病管理センター(Center for Disease Control)によってバリデートされたポリオブースターワクチンの開発につながっており、アウトブレイク地域で重篤なポリオを引き起こす現行の経口ポリオワクチンを中止するよう求める世界保健機関(World Health Organization)の2016年4月の要求事項に適合する時機の良い発明である。
Arlen PA,Falconer R,Cherukumilli S,Cole A,Cole AM,Oishi KK,Daniell H(2007)「葉緑体由来インターフェロンα2bのフィールド産生及び機能評価(Field production and functional evaluation of chloroplast-derived interferon-alpha2b)」.Plant Biotechnol J 5:511-525
Bally J,Nadai M,Vitel M,Rolland A,Dumain R,Dubald M(2009)「組換え葉緑体で起こる大量の外来性タンパク質合成への植物生理学的適応(Plant physiological adaptations to the massive foreign protein synthesis occurring in recombinant chloroplasts)」.Plant Physiol 150:1474-1481
Barkan A(1988)「複合葉緑体転写単位によってコードされるタンパク質は、各々がモノシストロニックmRNA及びポリシストロニックmRNAの両方から翻訳される(Proteins encoded by a complex chloroplast transcription unit are each translated from both monocistronic and polycistronic mRNAs)」.EMBO J 7:2637-2644
Boyhan D,Daniell H(2011)「機能性インスリン及びCペプチドの注射又は経口送達に向けたタバコ及びレタス葉緑体におけるプロインスリンの低コスト生産(Low-cost production of proinsulin in tobacco and lettuce chloroplasts for injectable or oral delivery of functional insulin and C-peptide)」.Plant Biotechnol J 9:585-598
Birch-Machin I,Newell CA,Hibberd JM,Gray JC(2004)「トランスプラストミックタバコの葉緑体におけるロタウイルスVP6タンパク質の蓄積はタンパク質安定性によって制限される(Accumulation of rotavirus VP6 protein in chloroplasts of transplastomic tobacco is limited by protein stability)」.Plant Biotechnol J 2:261-270
Chan HT,Daniell H(2015)「ヒト感染症に対する植物製経口ワクチン-まだ辿り着かないの?(Plant-made oral vaccines against human infectious diseases-Are we there yet?)」 Plant Biotechnol J 13:1056-1070
Dniell H,Datta R,Varma S,Gray S,Lee SB(1998)「葉緑体ゲノムの遺伝子操作を通じた除草剤耐性の封じ込め(Containment of herbicide resistance through genetic engineering of the chloroplast genome)」.Nat Biotechnol 16:345-348
Daniell H,Vivekananda J,Nielsen BL,Ye GN,Tewari KK,Sanford JC(1990)「葉緑体ベクターの微粒子銃送達後の培養タバコ細胞の葉緑体における一過性外来遺伝子発現(Transient foreign gene expression in chloroplasts of cultured tobacco cells after biolistic delivery of chloroplast vectors)」.Proc Natl Acad Sci USA 87:88-92
Daniell H,Ruiz G,Denes B,Sandberg L,Langridge W(2009)「トランスジェニック葉緑体におけるヒトインスリン様成長因子1の発現へのコドン組成及び調節エレメントの最適化並びに構造的同一性及び機能の評価(Optimization of codon composition and regulatory elements for expression of human insulin like growth factor-1 in transgenic chloroplasts and evaluation of structural identity and function)」.BMC Biotechnol 9:33
De Cosa B,Moar W,Lee SB,Miller M,Daniell H(2001)「葉緑体におけるBt cry2Aa2オペロンの過剰発現は殺虫性結晶の形成につながる(Overexpression of the Bt cry2Aa2 operon in chloroplasts leads to formation of insecticidal crystals)」.Nat Biotechnol 19:71-74
DeGray G,Rajasekaran K,Smith F,Sanford J,Daniell H(2001)「植物病原性細菌及び真菌を防除するための葉緑体ゲノムによる抗菌ペプチドの発現(Expression of an antimicrobial peptide via the chloroplast genome to control phytopathogenic bacteria and fungi)」.Plant Physiol 127:852-862
Domon B,Aebersold R(2010)「定量的プロテオミクス戦略を選択する際の選択肢及び考慮事項(Options and considerations when selecting a quantitative proteomics strategy)」.Nat Biotechnol 28:710-721
Eibl C,Zou Z,Beck A,Kim M,Mullet J,Koop HU(1999)「葉緑体形質転換によるプラスチドpsbA、rbcL及びrpl32 UTRエレメントのインビボ分析:タバコプラスチド遺伝子発現は転写物レベル及び翻訳効率の調整によって制御される(In vivo analysis of plastid psbA,rbcL and rpl32 UTR elements by chloroplast transformation:tobacco plastid gene expression is controlled by modulation of transcript levels and translation efficiency)」.Plant J 19:333-345
Gallien S,Duriez E,Crone C,Kellmann M,Moehring T,Domon B(2012)「四重極オービトラップ質量分析計におけるターゲットプロテオーム定量化(Targeted proteomic quantification on quadrupole-orbitrap mass spectrometer)」.Mol Cell Proteomics 11:1709-1723
Hassan SW,Waheed MT,Mueller M,Clarke JL,Shinwari ZK,Loessl AG(2014)「タバコプラスチドにおける融合タンパク質としてのグルタチオン-S-トランスフェラーゼを伴うHPV-16 L1カプソメアの発現:カプソメアベースのHPVワクチン手法(Expression of HPV-16 L1 capsomeres with glutathione-S-transferase as a fusion protein in tobacco plastids:an approach for a capsomere-based HPV vaccine)」.Hum Vaccin Immunother 10:2975-2982
Ingolia NT,Ghaemmaghami S,Newman JR,Weissman JS(2009)「リボソームプロファイリングを用いたヌクレオチド分解による翻訳のゲノムワイドインビボ分析(Genome-wide analysis in vivo of translation with nucleotide resolution using ribosome profiling)」.Science 324:218-223
Inka Borchers AM,Gonzalez-Rabade N,Gray JC(2012)「5’非翻訳領域及びコード領域の5’末端を変更後のタバコ葉緑体におけるロタウイルスVP6タンパク質の蓄積及び安定性の増加(Increased accumulation and stability of rotavirus VP6 protein in tobacco chloroplasts following changes to the 5’untranslated region and the 5’end of the coding region)」.Plant Biotechnol J 10:422-434
Jabeen R,Khan MS,Zafar Y,Anjum T(2010)「植物細胞小器官における高発現のためのcry1Ab遺伝子のコドン最適化(Codon optimization of cry1Ab gene for hyper expression in plant organelles)」.Mol Biol Rep 37:1011-1017
Jin S,Daniell H(2015)「改変葉緑体ゲノムはスマート化したばかり(The Engineered Chloroplast Genome Just Got Smarter)」.Trends Plant Sci 20:622-640
Kane JF(1995)「レアコドンクラスターが大腸菌における異種タンパク質の高レベル発現に及ぼす効果(Effects of rare codon clusters on high-level expression of heterologous proteins in Escherichia coli)」.Curr Opin Biotechnol 6:494-500
Kohli N,Westerveld DR,Ayache AC,Verma A,Shil P,Prasad T,Zhu P,Chan SL,Li Q,Daniell H(2014)「血液脳関門及び血液網膜関門を越えるバイオカプセル化タンパク質の経口送達(Oral delivery of bioencapsulated proteins across blood-brain and blood-retinal barriers)」.Mol Ther 22:535-546
Kwon KC,Nityanandam R,New JS,Daniell H(2013a)「葉緑体で発現したバイオカプセル化エキセンディン-4の経口送達はマウスの血糖値を低下させ、β-TC6細胞におけるインスリン分泌を刺激する(Oral delivery of bioencapsulated exendin-4 expressed in chloroplasts lowers blood glucose level in mice and stimulates insulin secretion in beta-TC6 cells)」.Plant Biotechnol J 11:77-86
Lakshmi PS,Verma D,Yang X,Lloyd B,Daniell H(2013)「カプセル状の低コスト結核ワクチン抗原:葉緑体における発現、バイオカプセル化、インビトロでの安定性及び機能評価(Low cost tuberculosis vaccine antigens in capsules:expression in chloroplasts,bio-encapsulation,stability and functional evaluation in vitro)」.PLoS One 8:e54708
Lee SB,Li B,Jin S,Daniell H(2011)「ウイルス及び細菌感染を制御するための葉緑体における抗菌ペプチドレトロサイクリン-101及びプロテグリン-1の発現及び特徴付け(Expression and characterization of antimicrobial peptides Retrocyclin-101 and Protegrin-1 in chloroplasts to control viral and bacterial infections)」.Plant Biotechnol J 9:100-115
Lenzi P,Scotti N,Alagna F,Tornesello ML,Pompa A,Vitale A,De Stradis A,Monti L,Grillo S,Buonaguro FM,Maliga P,Cardi T(2008)「葉緑体で発現したヒトパピローマウイルス16型L1カプシドタンパク質の翻訳融合はトランスプラストミックタバコにおける抗原蓄積を亢進させる(Translational fusion of chloroplast-expressed human papillomavirus type 16 L1 capsid protein enhances antigen accumulation in transplastomic tobacco)」.Transgenic Res.17:1091-1102.
Leon IR,Schwaemmle V,Jensen ON,Sprenger RR(2013)「溶液中消化効率の定量的評価が偏りのないタンパク質分析に最適なプロトコルを特定する(Quantitative assessment of in-solution digestion efficiency identifies optimal protocols for unbiased protein analysis)」.Mol Cell Proteomics 12:2992-3005
Lung B,Zemann A,Madej MJ,Schuelke M,Techritz S,Ruf S,Bock R,Huettenhofer A(2006)「ミトコンドリア及び葉緑体からの小さい非コードRNAの同定(Identification of small non-coding RNAs from mitochondria and chloroplasts)」.Nucleic Acids Res 34:3842-3852
McCabe MS,Klaas M,Gonzalez-Rabade N,Poage M,Badillo-Corona JA,Zhou F,Karcher D,Bock R,Gray JC,Dix PJ(2008)「ヒト免疫不全ウイルス1型(HIV-1)p24抗原の産生のための高バイオマスタバコ品種メリーランド・マンモスのプラスチド形質転換(Plastid transformation of high-biomass tobacco variety Maryland Mammoth for production of human immunodeficiency virus type 1(HIV-1)p24 antigen)」.Plant Biotechnol J 6:914-929
MacLean B,Tomazela DM,Shulman N,Chambers M,Finney GL,Frewen B,Kern R,Tabb DL,Liebler DC,MacCoss MJ(2010)「スカイライン:ターゲットプロテオミクス実験を作成及び分析するためのオープンソース文書エディタ(Skyline:an open source document editor for creating and analyzing targeted proteomics experiments)」.Bioinformatics 26:966-968
Nakamura,M.and Sugiura,M(2007)「タバコ葉緑体において同義コドンの翻訳効率が必ずしもコドン使用と相関するわけではない(Translation efficiencies of synonymous codons are not always correlated with codon usage in tobacco chloroplasts)」.Plant J 49:128-134
Quesada-Vargas T,Ruiz ON,Daniell H(2005)「トランスジェニック葉緑体における異種多重遺伝子オペロンの特徴付け:転写、プロセシング、及び翻訳(Characterization of heterologous multigene operons in transgenic chloroplasts:transcription,processing,and translation)」.Plant Physiol 8:1746-1762
Rosenberg AH,Goldman E,Dunn JJ,Studier FW,Zubay G(1993)「汎用コドン試験システムで実証した、連続AGGコドンが大腸菌における翻訳に及ぼす効果(Effects of consecutive AGG codons on translation in Escherichia coli,demonstrated with a versatile codon test system)」.J Bacteriol 175:716-722
Ruhlman T,Verma D,Samson N,Daniell H(2010)「トランス遺伝子組込み及び発現における異種葉緑体配列エレメントの役割(The role of heterologous chloroplast sequence elements in transgene integration and expression)」.Plant Physiol 152:2088-2104
Shenoy V,Kwon KC,Rathinasabapathy A,Lin S,Jin G,Song C,Shil P,Nair A,Qi Y,Li Q,Francis J,Katovich MJ,Daniell H,Raizada MK(2014)「植物細胞にバイオカプセル化したアンジオテンシン変換酵素2及びアンジオテンシン-(1-7)の経口送達は肺高血圧症を軽減する(Oral delivery of Angiotensin-converting enzyme 2 and Angiotensin-(1-7)bioencapsulated in plant cells attenuates pulmonary hypertension)」.Hypertension 64:1248-1259
Sherman A,Su J,Lin S,Wang X,Herzog RW,Daniell H(2014)「植物細胞にバイオカプセル化した抗原の経口送達による血友病AマウスモデルにおけるFVIIIに対する阻害因子形成の抑制(Suppression of inhibitor formation against FVIII in a murine model of hemophilia A by oral delivery of antigens bioencapsulated in plant cells)」.Blood 124:1659-1668
Shil PK,Kwon KC,Zhu P,Verma A,Daniell H,Li Q(2014)「植物細胞にバイオカプセル化したACE2/Ang-(1-7)の経口送達は実験的ぶどう膜炎及び自己免疫性ぶどう膜網膜炎を防ぐ(Oral delivery of ACE2/Ang-(1-7)bioencapsulated in plant cells protects against experimental uveitis and autoimmune uveoretinitis)」.Mol Ther 22:2069-2082
Verma D,Moghimi B,LoDuca PA,Singh HD,Hoffman BE,Herzog RW,Daniell H(2010)「バイオカプセル化凝固第IX因子の経口送達は血友病Bマウスの阻害因子形成及び致死的アナフィラキシーを防ぐ(Oral delivery of bioencapsulated coagulation factor IX prevents inhibitor formation and fatal anaphylaxis in hemophilia B mice)」.Proc Natl Acad Sci USA 107:7101-7106
Verma D,Samson NP,Koya V,Daniell H(2008)「葉緑体における外来性遺伝子の発現プロトコル(A protocol for expression of foreign genes in chloroplasts)」.Nat Protoc 3:739-758
Waheed MT,Thoenes N,Mueller M,Hassan SW,Gottschamel J,Loessl E,Kaul HP,Loessl AG(2011a)「アジュバントとしてのLTBと融合したヒトパピローマウイルス16型L1抗原を含む二重五量体ワクチン候補のプラスチド発現:トランスプラストミック植物は多面的表現型を示す(Plastid expression of a double-pentameric vaccine candidate containing human papillomavirus-16 L1 antigen fused with LTB as adjuvant:transplastomic plants show pleiotropic phenotypes)」.Plant Biotechnol J 9:651-660
Waheed MT,Thoenes N,Mueller M,Hassan SW,Razavi NM,Loessl E,Kaul HP,Loessl AG(2011b)「タバコにおけるカプソメアのアセンブリにつながる修飾ヒトパピローマウイルスL1タンパク質のトランスプラストミック発現:費用対効果の高い第2世代ワクチンに向けた一歩(Transplastomic expression of a modified human papillomavirus L1 protein leading to the assembly of capsomeres in tobacco:a step towards cost-effective second-generation vaccines)」.Transgenic Res 20:271-282
Wang X,Su J,Sherman A,Rogers GL,Liao G,Hoffman BE,Leong KW,Terhorst C,Daniell H,Herzog RW(2015)「血友病療法に対する植物ベースの経口トレランスはLAP+CD4+ T細胞を含めた複合的免疫調節応答を用いる(Plant-based oral tolerance to hemophilia therapy employs a complex immune regulatory response including LAP+CD4+ T cells)」.Blood 125:2418-2427
Ye GN,Hajdukiewicz PTJ,Broyles D,Rodriquez D,Xu CW,Nehra N,Staub JM(2001)「プラスチドが発現する5-エノールピルビルシキミ酸-3-リン酸シンターゼ遺伝子がタバコにおける高レベルのグリホセート耐性を提供する(Plastid-expressed 5-enolpyruvylshikimate-3-phosphate synthase genes provide high level glyphosate tolerance in tobacco)」.Plant J 25:261-270
Yu CH,Dang Y,Zhou Z,Wu C,Zhao F,Sachs MS,Liu Y(2015)「コドン使用は局所翻訳伸長速度に影響を与えて共翻訳タンパク質フォールディングを調節する(Codon usage influences the local rate of translation elongation to regulate co-translational protein folding)」.Mol Cell 59:744-754
Zoschke R,Barkan A(2015)「トウモロコシにおけるチラコイド結合リボソームのゲノムワイド分析は、チラコイド膜への共翻訳ターゲティングの原理を明らかにする(Genome-wide analysis of thylakoid-bound ribosomes in maize reveals principles of cotranslational targeting to the thylakoid membrane)」.Proc Natl Acad Sci USA 112:E1678-87
Zoschke R,Watkins KP,Barkan A(2013)「高速リボソームプロファイリング方法はインビボでの葉緑体リボソーム挙動を解明する(A rapid ribosome profiling method elucidates chloroplast ribosome behavior in vivo)」.Plant Cell 25:2265-2275
Burns,C.C.,Diop,O.M.,Sutter,R.W.& Kew,O.M.「ワクチン由来ポリオウイルス(Vaccine-derived polioviruses)」.J.Infect.Dis.210(Suppl.1),S283-S293(2014).
Famulare,M.& Hu,H.「エピデミック及びエンデミック疾患の系統地理学的データから伝染ネットワークを抽出する:シエラレオネにおけるエボラウイルス、2009年H1N1パンデミックインフルエンザ及びナイジェリアにおけるポリオ(Extracting transmission networks from phylogeographic data for epidemic and endemic diseases:Ebola virus in Sierra Leone,2009 H1N1 pandemic influenza and polio in Nigeria)」.Int.Health 7,130-138(2015).
Burns,C.C.et al.「ナイジェリア北部における大規模アウトブレイクの間の2型ワクチン由来ポリオウイルスの多重独立発生(Multiple independent emergences of type 2 vaccine-derived polioviruses during a large outbreak in northern Nigeria)」.J.Virol.87,4907-4922(2013).
Laxmivandana,R.,Yergolkar,P.,Gopalkrishna,V.& Chitambar,S.D.「インド南西部における急性弛緩性麻痺に関連する非ポリオエンテロウイルス感染症の特徴付け(Characterization of the non-polio enterovirus infections associated with acute flaccid paralysis in South-Western India)」.PLoS One 8,e61650(2013).
Dhole,T.N.et al.「インドの急性弛緩性麻痺小児における非ポリオエンテロウイルス:ポリオ根絶前の重要な評価(Non-polio enteroviruses in acute flaccid paralysis children of India:vital assessment before polio eradication)」.J.Paediatr.Child.Health 45,409-413(2009).
Brown,B.,M.S.Oberste,K.Maher,& M.A.Pallansch.「完全ゲノム配列決定はポリオウイルスとヒトエンテロウイルス種Cのメンバーとが非カプシドコード領域において近縁関係にあることを示す(Complete genomic sequencing shows that polioviruses and members of human enterovirus species C are closely related in the noncapsid coding region)」.J.Virol.77,8973-8984(2003).
Rakoto-Andrianarivelo,M.et al.「マダガスカルにおける高頻度のヒトエンテロウイルス種C循環(High frequency of human enterovirus species C circulation in Madagascar)」.J.Clin.Microbiol.43,242-249(2005).
Adeniji,J.A.& Faleye,T.O.「ナイジェリアで循環するエンテロウイルスC株及び組換え循環ワクチン由来ポリオウイルスの発生に対するその寄与(Enterovirus C strains circulating in Nigeria and their contribution to the emergence of recombinant circulating vaccine-derived polioviruses)」.Arch.Virol.160,675-683(2015).
Jiang,P.et al.「CクラスターコクサッキーA型ウイルスからの多様なポリオウイルス出現のエビデンス及び世界的ポリオウイルス根絶に向けた意味(Evidence for emergence of diverse polioviruses from C-cluster coxsackie A viruses and implications for global poliovirus eradication)」.Proc.Natl.Acad.Sci.USA 104,9457-9462(2007).
Kouiavskaia,D.et al.「皮内不活化ポリオウイルスワクチン:前臨床用量設定試験(Intradermal inactivated poliovirus vaccine:a preclinical dose-finding study)」.J.Infect.Dis.211,1447-1450(2015).
Parker,E.P.,Molodecky,N.A.,Pons-Salort,M.,O’Reilly,K.M.& Grassly,N.C.「不活化ポリオウイルスワクチンが粘膜免疫に及ぼす影響:ポリオ根絶最終段階に向けた意味(Impact of inactivated poliovirus vaccine on mucosal immunity:implications for the polio eradication endgame)」.Expert Rev.Vaccines 14,1113-1123(2015).
Chan,H.T.& Daniell,H.「ヒト感染症に対する植物製経口ワクチン-まだ辿り着かないの?(Plant-made oral vaccines against human infectious diseases-Are we there yet?)」 Plant Biotechnol.J.13,1056-1070(2015).
Xiao,Y.et al.「ヒト非免疫又は免疫調節性細胞への植物細胞にバイオカプセル化したタンパク質の低コスト送達(Low cost delivery of proteins bioencapsulated in plant cells to human non-immune or immune modulatory cells)」.Biomaterials doi:10.1016/j.biomaterials.2015.11.051(2015).
Jin,S.& Daniell,H.「改変葉緑体ゲノムはスマート化したばかり(The engineered chloroplast genome just got smarter)」.Trends Plant Sci.20,622-640(2015).
Kwon,K.C.,Verma,D.,Singh,N.D.,Herzog,R.& Daniell H.「植物細胞にバイオカプセル化したヒトバイオ医薬品、自己抗原及びワクチン抗原の経口送達(Oral delivery of human biopharmaceuticals,autoantigens and vaccine antigens bioencapsulated in plant cells)」.Adv.Drug Deliv.Rev.65,782-799(2013).
Kong.,Q.et al.「トランスジェニック植物で発現するB型肝炎表面抗原による経口免疫化(Oral immunization with hepatitis B surface antigen expressed in transgenic plants)」.Proc.Natl.Acad.Sci.USA 98,11539-11544(2001).
Thanavala,Y.et al.「食用B型肝炎ワクチンのヒトにおける免疫原性(Immunogenicity in humans of an edible vaccine for hepatitis B)」.Proc.Natl.Acad.Sci.USA 102,3378-3382(2005).
Rybicki,E.P.「ウイルスに対する植物ベースのワクチン(Plant-based vaccines against viruses)」.Virol.J.11,205-224(2014).
Ruhlman,T.,Ahangari,R.Devine,A.Samsam,M.& Daniell H.「レタス及びタバコ葉緑体におけるコレラ毒素Bプロインスリン融合タンパク質の発現-経口投与は非肥満糖尿病マウスの膵島炎の発症を防ぐ(Expression of cholera toxin B-proinsulin fusion protein in lettuce and tobacco chloroplasts-oral administration protects against development of insulitis in non-obese diabetic mice)」.Plant Biotechnol.J.5,495-510(2007).
Verma,D.,Samson,N.P.,Koya,V.& Daniell,H.「葉緑体における外来性遺伝子の発現のプロトコル(A protocol for expression of foreign genes in chloroplasts)」.Nat.Protoc.3,739-758(2008).
Kanagaraj,A.P.,Verma,D.& Daniell H.「レタス葉緑体におけるデング3型プレ膜及びエンベロープポリタンパク質の発現(Expression of dengue-3 premembrane and envelope polyprotein in lettuce chloroplasts)」.Plant Mol.Biol.76,323-333(2011).
Domingos,M.de O.et al.「経口及び非経口の両方のワクチン接種用の新規油ベースの抗原送達製剤(A new oil-based antigen delivery formulation for both oral and parenteral vaccination)」.Open Drug Deliv.J.2,52-60(2008).
Lee,G.et al..「アジュバントサポニンを伴う植物小胞体で発現する赤血球凝集素H5の経口免疫化はマウスを高病原性鳥インフルエンザAウイルス感染から防御する(Oral immunization of haemaggulutinin H5 expressed in plant endoplasmic reticulum with adjuvant saponin protects mice against highly pathogenic avian influenza A virus infection)」.Plant Biotechnol.J.13,62-72(2015).
Frey,A.,Di Canzio & J.,Zurakowski,D.「イムノアッセイのための統計的に定義付けられたエンドポイント力価決定方法(A statistically defined endpoint titer determination method for immunoassays)」.J.Immunol.Methods 221,35-41(1998).
Dietrich,J.,Andreasen,L.V.,Andersen,P.& Agger,E.M.「アジュバントCAF01に製剤化した不活化ポリオウイルスによる誘導用量節約(Inducing dose sparing with inactivated polio virus formulated in adjuvant CAF01)」.PLoS One 9,e100879(2014).
種々のポリオウイルス血清型に対する免疫を付与するコールドチェーン及びウイルス不要の植物製ブースターワクチン
植物形質転換ベクターの構築
セービン1コード配列(CDS)に由来する2つのVP1タンパク質をタバコ及びレタス葉緑体で発現させた。図4Aを参照のこと。第1の配列は、経粘膜担体CTBと融合した天然906bp VP1配列(51.98%AT)を包含した。第2の配列は、実施例Iに記載されるとおりタバコ及びレタス葉緑体における発現にコドン最適化した。タンパク質中の302アミノ酸のうち187個のコドンについて、コドン使用頻度が葉緑体psbA遺伝子(最も高度に翻訳される葉緑体遺伝子)のものに類似するよう変更することにより最適化した。レアコドンを葉緑体におけるトランス遺伝子発現に最適なコドンに置き換え、最適化したVP1遺伝子のAT含量が51.98%から59.03%に増加した。両方のCTB-VP1融合遺伝子とも、GPGP(Gly-Pro-Gly-Pro)(配列番号13)ヒンジ領域と共に構築して融合したVP1の立体障害を最小限に抑え、並びにフューリン切断部位、RRKRSV(Arg-Arg-Lys-Arg-Ser-Val)(配列番号14)と共に構築した(図10A)。融合遺伝子はpsbAプロモーター及び5’非翻訳領域(UTR)によってドライブして発現を増加させ、及びpsbA 3’-UTRによって転写物を安定化させた。
微粒子銃パーティクルボンバードメントによってCTB-VP1トランスプラストミック系統を作成した。スペクチノマイシン含有培地で選択した後、タバコについて3P/3M及び5P/2M又はレタスについて16S-Fw/3M及び5P/2MのプライマーセットによるPCR分析によって推定トランスプラストミック系統を確認した(データは示さず)。CTB-VP1遺伝子のターゲット組込み及びホモプラスミーをtrnI及びtrnAフランキング配列でプローブしたサザンブロットによって更に確かめた(図9B)。全ての独立したトランスプラストミックタバコ系統が、AflIII消化した全DNAブロットにおいて野生型からの4.4kb断片を除き、正しいサイズの個別的なハイブリダイゼーション断片を示した(図9A)。トランスプラストミックレタス系統は12.2kbの予想サイズのハイブリダイズ断片を示したが、非形質転換野生型植物からの9.1kb断片もまた示し、ヘテロプラスミーが示唆された。しかしながら、2ラウンドの選択後、トランスプラストミックレタス系統1はほぼホモプラスミーに達した(図9C及び図9D)。従ってサザンブロット分析により、葉緑体ゲノムへのトランス遺伝子の部位特異的な安定組込み及びトランス遺伝子ホモプラスミーが確認された。図9Dに示されるとおり、レタス由来のCTB-VP1は44kDaの正しい分子質量で検出された。
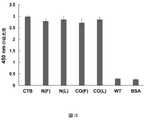
トランスプラストミック植物におけるCTB-VP1蓄積をウエスタンブロット分析によって定量化した。天然及びコドン最適化植物のバンドにおけるCTB-VP1タンパク質の強度を既知量のCTB標準と比較した。ウエスタンブロット分析から、天然VP1遺伝子産物と比較したときコドン最適化VP1配列がCTB-VP1の蓄積を有意に増加させたことが示された。天然及びコドン最適化CTB-VP1は全葉タンパク質のそれぞれ最大0.1%及び4~5%に達した(ターゲットMS又はウエスタンブロットを用いた定量化に基づけば最大100倍の増加、データは示さず)。図9Dに示すとおり、44kDaの正しい分子質量を有する単量体CTB-VP1融合タンパク質が抗CTB又はVP1抗体で検出された。CTB-VP1抗原は、凍結葉試料と比較したとき凍結乾燥細胞中で約20倍増加した。試験した全ての凍結乾燥試料において周囲温度で4及び8ヵ月間の貯蔵後にCTB-VP1融合タンパク質のインタクトな単量体バンドが観察され、いかなるCTB-VP1の検出可能な分解もなかった。GM1結合ELISAアッセイを用いて、葉緑体で発現したCTB-VP1の五量体構造の形成を評価した。図10に示すとおり、タバコからの天然の及びコドン最適化した新鮮及び凍結乾燥CTB-VP1の両方がCTB(陽性対照)と同等の吸光度を示し、一方、野生型植物又はBSA(陰性対照)からはシグナルは検出されなかった。これは、新鮮葉緑体及び凍結乾燥葉緑体の両方で発現するCTB-VP1融合タンパク質が、タンパク質薬物送達の要件であるGM1ガングリオシド受容体に結合し得る正しい五量体構造を形成したことを示している。凍結乾燥し、及び8ヵ月間周囲温度で長期間保存した後にも、VP1の安定性、GM1ガングリオシド受容体への結合の有効性、正しいフォールディング及び五量体アセンブリが維持された。
植物由来サブユニットワクチンは耐熱性であり、動物病原体による汚染がない。こうしたワクチンはまた、複数の感染症を防御するため、複数の抗原及び経粘膜担体(carrire)を含むように操作することもできる。かかる機構的及び概念的進歩は、発酵、精製、低温貯蔵及び輸送などの複雑な生産システムのコスト削減により、ワクチン送達に革命をもたらし得る。植物ベースのワクチン生産の2つの大きな課題としては、核ゲノムによる抗原の発現レベルの低さ、及びアジュバントによる抗原プライミング注射なしにはトレランスが誘導される可能性があることが挙げられる。

セービン1コード配列(CDS)に由来する2つのVP1タンパク質をタバコ葉緑体で発現させた。第1の配列は、経粘膜担体CTBと融合した天然906bp VP1配列(51.98%AT)を包含した。第2の配列は、タバコ及びレタス葉緑体における発現にコドン最適化した。タンパク質中の302アミノ酸のうち187個のコドンについて、コドン使用頻度が葉緑体psbA遺伝子(最も高度に翻訳される葉緑体遺伝子)のものに類似するよう変更することにより最適化した。レアコドンを葉緑体におけるトランス遺伝子発現に最適なコドンに置き換え、最適化したVP1遺伝子のAT含量が51.98%から59.03%に増加した。両方のCTB-VP1融合遺伝子とも、GPGP(Gly-Pro-Gly-Pro)ヒンジ領域と共に構築して融合したVP1の立体障害を最小限に抑え、並びにフューリン切断部位、RRKRSV(Arg-Arg-Lys-Arg-Ser-Val)と共に構築した(図4A及び図9B)。融合遺伝子はpsbAプロモーター及び5’非翻訳領域(UTR)によってドライブして発現を増加させ、及びpsbA 3’-UTRによって転写物を安定化させた。
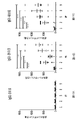
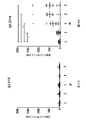
上述のとおり、マウスを上記の表に示される群に分けた。免疫化の1日前、全ての群のマウスを採血した。本発明者らは、アジュバントと共にIPV又はCTB-VP1でブーストした後29、43、57、87及び117日目に種々の時点のVP1特異的IgG1及びIgA抗体の血清力価を決定した。試験した全ての時点で、全身及び粘膜免疫応答をELISAによって定量化した。VP1-IgG1力価は初めの1ヵ月で最も高いレベルに達し、同じレベルに留まった。更なるブースティングによってはVP1-IgG1レベルは増加しなかった(図11を参照)。コドン最適化CTB-VP1+両方のアジュバントでブーストしたマウスもまた、IPVでブーストしたもの(群9、図11B~図11Fを参照)よりも高い抗VP1 IgG1抗体力価を有した。同様に、VP1-IgA力価も経口ブースティング後に初めの1ヵ月で増加し、後続のブースティングがもたらしたIgA力価の増加は僅かであった(図11G~図11J)。際立って対照的に、IPVブースティングによってはIgA力価は増加せず、全身ワクチン送達の限界が確認された。これらの結果は、CTB-VP1を発現する植物細胞による経口ブースティングが粘膜免疫応答及び全身免疫応答の両方を誘導し得る一方、IPVプライム/ブーストはより低いレベルのIgG1及び無視できる程のIgA力価を生じさせたことを示している。
抗VP1 IgG1及びIgA抗体がポリオウイルスを中和することができるかどうかを決定するため、3つ全てのセービン血清型についてウイルス中和力価を測定した。全ての実験群及び未処置群からの血液試料をCDCにおいて二重盲検式にトリプリケート試料で試験した。血清試料は、抗体がlog2力価≧2.5で存在する場合に血清反応陽性と見なした。個々の中和力価をプロットした。バーは各群の中和力価平均値±SEMを表す。結果は、IPVプライミング後に、全ての実験群-天然(群3~5)又はコドン最適化VP1抗原+いずれか一方又は両方のアジュバント(群6~9)による経口ブースティング、並びに同じIPVのみによるプライミング及びブースティング(群2)が3つ全てのセービン株血清型に対して有意に高い中和力価を誘導したことを示している。結果は、コドン最適化VP1+サポニン及びスクアレンによる経口ブースティング(群8)が最も多いセービン1、セービン2及びセービン3中和抗体を生じ、プライミング及びブーストの両方をIPVで行ったマウス群(群2)と同様であったことを示している(図12)。異なるセービンウイルス血清型間で中和有効性に有意な統計学的差はなかったが、IPVプライム/ブースト(P<0.01)及び植物細胞を用いた経口ブースティング(P<0.001)でセービン3が最も高い中和力価を有した。しかしながら、IPVプライミングなしにコドン最適化VP1で経口的にブーストしたのみのマウスの血清中には、中和抗体は検出されなかった。
VDPV2のアウトブレイク後、血清型2型OPVの使用中止リスクを軽減するため少なくとも1回のIPV接種をルーチンの免疫スケジュールに取り入れることを支援して、2013年に幾つかの重要な地球規模の政策及び手順が採られた。WHOの戦略的諮問専門家グループ(Strategic Advisory Group of Experts:SAGE)はルーチンの免疫プログラムからのOPV2の使用中止を全ての国に勧告し、これは2015年のOPVを使用する全ての国における少なくとも1回のIPV接種の導入、及び2016年の全世界的なOPV2の使用中止によって促進された(世界ポリオ根絶構想(global polio eradication initiative:GPEI)、2015年)。これらの現状での優先事項を達成するためには、許認可及びルーチン免疫への二価OPVの利用し易さの向上、並びにOPVを使用する全ての国への少なくとも1回のIPV接種の確かな実現を含め、必要な活動に重点が置かれなければならない。しかしながら、IPVの全世界的な導入及び来たる三価OPV(tOPV)から二価OPV(bOPV)への切り替えの準備には、IPV供給の逼迫、持続的cVDPV伝播及び封じ込め要件に適合するための課題を含め、複数のリスクがなおも残っている(GPEIポリオ根絶最終段階の中期レビュー(Polio Eradication & Endgame Midterm Review)、2015年)。最も重要なことには、IPV以外に利用可能なブースター技術はなく、多くの発展途上国はその費用を負担できない。更に、OPVワクチン接種のルーチンでの使用は、世界PV根絶上は中止すべきであり、全世界でOPVの代わりにIPVを導入することが求められている。同時に、VDPVの出現及び将来起こる野生型PVのアウトブレイクに対して高いレベルの集団免疫を維持する必要がある。しかしながら、IPVワクチン接種1回当たりの現在の費用は発展途上国にとって高過ぎる。
1.Burns,C.C.,Diop,O.M.,Sutter,R.W.& Kew,O.M.「ワクチン由来ポリオウイルス(Vaccine-derived polioviruses)」.J.Infect.Dis.210(Suppl.1),S283-S293(2014).
2.Famulare,M.& Hu,H.「エピデミック及びエンデミック疾患の系統地理学的データから伝染ネットワークを抽出する:シエラレオネにおけるエボラウイルス、2009年H1N1パンデミックインフルエンザ及びナイジェリアにおけるポリオ(Extracting transmission networks from phylogeographic data for epidemic and endemic diseases:Ebola virus in Sierra Leone,2009 H1N1 pandemic influenza and polio in Nigeria)」.Int.Health 7,130-138(2015).
3.Burns,C.C.et al.「ナイジェリア北部における大規模アウトブレイクの間の2型ワクチン由来ポリオウイルスの多重独立発生(Multiple independent emergences of type 2 vaccine-derived polioviruses during a large outbreak in northern Nigeria)」.J.Virol.87,4907-4922(2013).
4.Laxmivandana,R.,Yergolkar,P.,Gopalkrishna,V.& Chitambar,S.D.「インド南西部における急性弛緩性麻痺に関連する非ポリオエンテロウイルス感染症の特徴付け(Characterization of the non-polio enterovirus infections associated with acute flaccid paralysis in South-Western India)」.PLoS One 8,e61650(2013).
5.Dhole,T.N.et al.「インドの急性弛緩性麻痺小児における非ポリオエンテロウイルス:ポリオ根絶前の重要な評価(Non-polio enteroviruses in acute flaccid paralysis children of India:vital assessment before polio eradication)」.J.Paediatr.Child.Health 45,409-413(2009).
6.Brown,B.,M.S.Oberste,K.Maher,& M.A.Pallansch.「完全ゲノム配列決定はポリオウイルスとヒトエンテロウイルス種Cのメンバーとが非カプシドコード領域において近縁関係にあることを示す(Complete genomic sequencing shows that polioviruses and members of human enterovirus species C are closely related in the noncapsid coding region)」.J.Virol.77,8973-8984(2003).
7.Rakoto-Andrianarivelo,M.et al.「マダガスカルにおける高頻度のヒトエンテロウイルス種C循環(High frequency of human enterovirus species C circulation in Madagascar)」.J.Clin.Microbiol.43,242-249(2005).
8.Adeniji,J.A.& Faleye,T.O.「ナイジェリアで循環するエンテロウイルスC株及び組換え循環ワクチン由来ポリオウイルスの発生に対するその寄与(Enterovirus C strains circulating in Nigeria and their contribution to the emergence of recombinant circulating vaccine-derived polioviruses)」.Arch.Virol.160,675-683(2015).
9.Jiang,P.et al.「CクラスターコクサッキーA型ウイルスからの多様なポリオウイルス出現のエビデンス及び世界的ポリオウイルス根絶に向けた意味(Evidence for emergence of diverse polioviruses from C-cluster coxsackie A viruses and implications for global poliovirus eradication)」.Proc.Natl.Acad.Sci.USA 104,9457-9462(2007).
10.Kouiavskaia,D.et al.「皮内不活化ポリオウイルスワクチン:前臨床用量設定試験(Intradermal inactivated poliovirus vaccine:a preclinical dose-finding study)」.J.Infect.Dis.211,1447-1450(2015).
11.Parker,E.P.,Molodecky,N.A.,Pons-Salort,M.,O’Reilly,K.M.& Grassly,N.C.「不活化ポリオウイルスワクチンが粘膜免疫に及ぼす影響:ポリオ根絶最終段階に向けた意味(Impact of inactivated poliovirus vaccine on mucosal immunity:implications for the polio eradication endgame)」.Expert Rev.Vaccines 14,1113-1123(2015).
12.Chan,H.T.& Daniell,H.「ヒト感染症に対する植物製経口ワクチン-まだ辿り着かないの?(Plant-made oral vaccines against human infectious diseases-Are we there yet?)」 Plant Biotechnol.J.13,1056-1070(2015).
13.Xiao,Y.et al.「ヒト非免疫又は免疫調節性細胞への植物細胞にバイオカプセル化したタンパク質の低コスト送達(Low cost delivery of proteins bioencapsulated in plant cells to human non-immune or immune modulatory cells)」.Biomaterials doi:10.1016/j.biomaterials.2015.11.051(2015).
14.Jin,S.& Daniell,H.「改変葉緑体ゲノムはスマート化したばかり(The engineered chloroplast genome just got smarter)」.Trends Plant Sci.20,622-640(2015).
15.Kwon,K.C.,Verma,D.,Singh,N.D.,Herzog,R.& Daniell H.「植物細胞にバイオカプセル化したヒトバイオ医薬品、自己抗原及びワクチン抗原の経口送達(Oral delivery of human biopharmaceuticals,autoantigens and vaccine antigens bioencapsulated in plant cells)」.Adv.Drug Deliv.Rev.65,782-799(2013).
16.Kong.,Q.et al.「トランスジェニック植物で発現するB型肝炎表面抗原による経口免疫化(Oral immunization with hepatitis B surface antigen expressed in transgenic plants)」.Proc.Natl.Acad.Sci.USA 98,11539-11544(2001).
17.Thanavala,Y.et al.「食用B型肝炎ワクチンのヒトにおける免疫原性(Immunogenicity in humans of an edible vaccine for hepatitis B)」.Proc.Natl.Acad.Sci.USA 102,3378-3382(2005).
18.Rybicki,E.P.「ウイルスに対する植物ベースのワクチン(Plant-based vaccines against viruses)」.Virol.J.11,205-224(2014).
19.de Costa,F.et al.「キラヤ・ブラジリエンシス又はQuil-aサポニンをアジュバントとした代替的不活化ポリオウイルスワクチンは特異的免疫応答の誘導において等しく有効である(Alternative inactivated poliovirus vaccines adjuvanted with Quillaja brasiliensis or Quil-a saponins are equally effective in inducing specific immune responses)」.PLoS One 9,e105374(2014).
20.Malik,B.,Gupta,R.K.,Rath,G.& Goyal,A.K.「経口免疫用のpH応答性新規エマルションアジュバントの開発及びインビボ評価(Development of pH responsive novel emulsion adjuvant for oral immunization and in vivo evaluation)」.Eur.J.Pharm.Biopharm.87,589-597(2014).
21.Verdijk,P.et al.「乳児における水酸化アルミニウム有り及び無しの初代系列のセービン-IPVの安全性及び免疫原性(Safety and immunogenicity of a primary series of Sabin-IPV with and without aluminum hydroxide in infants)」.Vaccine 32,4938-4944(2014).
22.Davoodi-Semiromi,A.et al.「葉緑体由来ワクチン抗原は経口又は注射送達によってコレラ及びマラリアにする二重免疫を付与する(Chloroplast-derived vaccine antigens confer dual immunity against cholera and malaria by oral or injectable delivery)」.Plant Biotechnol.J.8,223-242(2010).
23.Limaye,A.,Koya,V.,Samsam,M.& Daniell,H.「トランスジェニック葉緑体で発現するバイオカプセル化緑色蛍光タンパク質のマウス循環系への受容体介在性経口送達(Receptor-mediated oral delivery of a bioencapsulated green fluorescent protein expressed in transgenic chloroplasts into the mouse circulatory system)」.FASEB J.20,959-961(2006).
24.Verma,D.et al.「バイオカプセル化凝固第IX因子の経口送達は血友病Bマウスの阻害因子形成及び致死的アナフィラキシーを防ぐ(Oral delivery of bioencapsulated coagulation factor IX prevents inhibitor formation and fatal anaphylaxis in hemophilia B mice)」.Proc.Natl.Acad.Sci.USA 107,7101-7106(2010).
25.Lakshmi,P.S.,Verma,D.,Yang,X.,Lloyd,B.& Daniell,H.「カプセル状の低コスト結核ワクチン抗原:葉緑体における発現、バイオカプセル化、インビトロでの安定性及び機能評価(Low cost tuberculosis vaccine antigens in capsules:expression in chloroplasts,bio-encapsulation,stability and functional evaluation in vitro)」.PLoS One 8,e54708(2013).
26.Shil,P.K.et al.「植物細胞にバイオカプセル化したACE2/Ang-(1-7)の経口送達は実験的ぶどう膜炎及び自己免疫性ぶどう膜網膜炎を防ぐ(Oral delivery of ACE2/Ang-(1-7)bioencapsulated in plant cells protects against experimental uveitis and autoimmune uveoretinitis)」.Mol.Ther.22,2069-2082(2014).
27.Su,J.et al.「血友病Bにおける経口トレランス誘導のためのレタス細胞にバイオカプセル化した凝固第IX因子の低コスト工業生産(Low cost industrial production of coagulation factor IX bioencapsulated in lettuce cells for oral tolerance induction in hemophilia B)」.Biomaterials 70,84-93(2015).
28.Buchman,G.W.et al.「タンパク質ベースの天然痘ワクチンは非ヒト霊長類を致死性サル痘ウイルス攻撃から防御する(A protein-based smallpox vaccine protects non-human primates from a lethal monkeypox virus challenge)」.Vaccine 28,6627-6636(2010).
29.Fogg,C.N.et al.「組換えタンパク質に対するアジュバント亢進性の抗体反応はオルトポックスウイルス攻撃に対するマウス及びサルの防御と相関する(Adjuvant-enhanced antibody responses to recombinant proteins correlates with protection of mice and monkeys to orthopoxvirus challenges)」.Vaccine 25,2787-2799(2007).
30.Fogg,C.et al.「細胞内及び細胞外ビリオンの複数の組換え外膜タンパク質によるワクチン接種によって誘導されるワクシニアウイルスに対する防御免疫(Protective immunity to vaccinia virus induced by vaccination with multiple recombinant outer membrane proteins of intracellular and extracellular virions)」.J.Virol.78,10230-10237(2004).
31.Plotkin,S.A.「ワクチン接種によって誘導される防御の相関関係(Correlates of protection induced by vaccination)」.Clin.Vaccine Immunol.17,1055-1065(2010).
32.Burton,D.R.「抗体、ウイルス及びワクチン(Antibodies,viruses and vaccines)」.Nat.Rev.Immunol.2,706-713(2002).
33.Burioni,R.,Williamson,R.A.,Sanna,P.P.,Bloom,F.E.& Burton,D.R.「糖タンパク質Dに対する組換えヒトFabはインビトロで単純ヘルペスウイルス1型及び2型の感染性を中和し、及び細胞間伝播を予防する(Recombinant human Fab to glycoprotein D neutralizes infectivity and prevents cell-to-cell transmission of herpes simplex viruses 1 and 2 in vitro)」.Proc.Natl.Acad.Sci.USA 91,355-359(1994).
34.Hooks,J.J.,Burns,W.,Hayashi,K.,Geis,S.& Notkins,A.L.「中和抗体の存在下におけるウイルスの拡散:泡沫状ウイルス感染における持続機構(Viral spread in the presence of neutralizing antibody:mechanisms of persistence in foamy virus infection)」.Infect.Immun.14,1172-1178(1976).
35.Pantaleo,G.et al.「抗V3抗体が無細胞及び細胞間ヒト免疫不全ウイルス伝播に及ぼす効果(Effect of anti-V3 antibodies on cell-free and cell-to-cell human immunodeficiency virus transmission)」.Eur.J.Immunol.25,226-231(1995).
36.Ruhlman,T.,Ahangari,R.Devine,A.Samsam,M.& Daniell H.「レタス及びタバコ葉緑体におけるコレラ毒素Bプロインスリン融合タンパク質の発現-経口投与は非肥満糖尿病マウスの膵島炎の発症を防ぐ(Expression of cholera toxin B-proinsulin fusion protein in lettuce and tobacco chloroplasts-oral administration protects against development of insulitis in non-obese diabetic mice)」.Plant Biotechnol.J.5,495-510(2007).
37.Verma,D.,Samson,N.P.,Koya,V.& Daniell,H.「葉緑体における外来性遺伝子の発現プロトコル(A protocol for expression of foreign genes in chloroplasts)」.Nat.Protoc.3,739-758(2008).
38.Kanagaraj,A.P.,Verma,D.& Daniell H.「レタス葉緑体におけるデング3型プレ膜及びエンベロープポリタンパク質の発現(Expression of dengue-3 premembrane and envelope polyprotein in lettuce chloroplasts)」.Plant Mol.Biol.76,323-333(2011).
39.Domingos,M.de O.et al.「経口及び非経口の両方のワクチン接種用の新規油ベースの抗原送達製剤(A new oil-based antigen delivery formulation for both oral and parenteral vaccination)」.Open Drug Deliv.J.2,52-60(2008).
40.Lee,G.et al.「アジュバントサポニンを伴う植物小胞体で発現する赤血球凝集素H5の経口免疫化はマウスを高病原性鳥インフルエンザAウイルス感染から防御する(Oral immunization of haemaggulutinin H5 expressed in plant endoplasmic reticulum with adjuvant saponin protects mice against highly pathogenic avian influenza A virus infection)」.Plant Biotechnol.J.13,62-72(2015).
41.Frey,A.,Di Canzio & J.,Zurakowski,D.「イムノアッセイのための統計的に定義付けられたエンドポイント力価決定方法(A statistically defined endpoint titer determination method for immunoassays)」.J.Immunol.Methods 221,35-41(1998).
42.Dietrich,J.,Andreasen,L.V.,Andersen,P.& Agger,E.M.「アジュバントCAF01に製剤化した不活化ポリオウイルスによる誘導用量節約(Inducing dose sparing with inactivated polio virus formulated in adjuvant CAF01)」.PLoS One 9,e100879(2014).
植物葉緑体にバイオカプセル化したコドン最適化インスリン様成長因子1の経口送達
ヒトインスリン様成長因子1(IGF-1)は、傷害後の筋芽細胞/線維形成、分化及び再生における骨格筋の成長及び発達において重要な役割を果たす。EペプチドがIGF-1の有効性を高めるため、葉緑体でPro-IGF-1を発現させてコストを削減し、経口送達を促進することが望ましい。
強制経口投与後の植物由来CTB-Pro-IGF-1によるIGFRのリン酸化並びに循環系及び筋組織におけるPro-IGF-1の維持から、植物細胞にバイオカプセル化した機能性IGF1の低コスト生産及び送達にこのシステムが適合することが確認される。凍結乾燥植物細胞は、IGF-1の有効性の低下なしに周囲温度で無期限に貯蔵することができる。
葉緑体におけるEペプチドと併せたPro-IGF-1の発現は、筋肉障害を含めた、IGF-1欠損によって引き起こされる障害を治療するための有効、効率的且つ廉価な経口薬物送達概念を提供する。この手法は、反復的長期薬物送達への患者コンプライアンスを高めることに加え、医療費の高騰に対処するための技術的な進歩をもたらす。
レタスで作製されるう蝕治療用の廉価なバイオ医薬品
う蝕は、世界中に蔓延しているバイオフィルム関連口腔疾患である。抗菌薬はエキソポリサッカライド(EPS)マトリックスに浸透しないため、最小限の有効性しかない。従って、本例では、本発明者らは、抗菌ペプチド(AMP)と融合したEPS分解酵素デキストラナーゼ及びムタナーゼを発現させる。植物葉緑体における組換え酵素生産は、非常に高価な発酵、精製、低温貯蔵/輸送及び侵襲的外科的送達をなくして周囲温度での貯蔵を促進するため、1000~3,100倍安価である。本例の主な目標は、AMP及び酵素を発現する凍結乾燥植物細胞が含浸されたチューインガムを開発することである。従って、レポーター遺伝子GFPを発現する凍結乾燥植物細胞で作られたチューインガムで、薬物放出が最大限となるように咀嚼シミュレータを使用して咀嚼速度及び時間を最適化する初期研究を実施した。
Claims (13)
- 葉緑体における目的のタンパク質をコードするトランス遺伝子の翻訳を増加させる方法であって、
a)前記目的のタンパク質をコードする核酸の天然配列を分析すること、及び前記配列中のレアコドンを高等種子植物種の葉緑体のpsbA遺伝子で優先的に使用されるコドンに置き換えること;
b)合成のコドン最適化配列を作製すること、及び前記配列を葉緑体形質転換ベクターにクローニングすることであって、前記合成配列が、前記葉緑体での発現に好適な5’及び3’調節エレメントに作動可能に連結されていること;
c)前記目的のタンパク質が発現する条件下で標的植物を前記ベクターで形質転換することであって、前記レアコドンを優先的コドンで置換することにより、天然配列を用いて観察される発現レベルと比べて少なくとも2倍のタンパク質発現の増加が生じること
を含み、
フェニルアラニンのレアコドンが優先的なTTTコドンに置き換えられており、
ロイシンのレアコドンが優先的なTTAコドンに置き換えられており、
イソロイシンのレアコドンが優先的なATTコドンに置き換えられており、
バリンのレアコドンが優先的なGTAコドンに置き換えられており、
セリンのレアコドンが優先的なTCTコドンに置き換えられており、
プロリンのレアコドンが優先的なCCTコドンに置き換えられており、
スレオニンのレアコドンが優先的なACTコドンに置き換えられており、
アラニンのレアコドンが優先的なGCTコドンに置き換えられており、
チロシンのレアコドンが優先的なTATコドンに置き換えられており、
ヒスチジンのレアコドンが優先的なCACコドンに置き換えられており、
グルタミンのレアコドンが優先的なCAAコドンに置き換えられており、
アスパラギンのレアコドンが優先的なAACコドンに置き換えられており、
リジンのレアコドンが優先的なAAAコドンに置き換えられており、
アスパラギン酸のレアコドンが優先的なGATコドンに置き換えられており、
グルタミン酸のレアコドンが優先的なGAAコドンに置き換えられており、
システインのレアコドンが優先的なTGTコドンに置き換えられており、
トリプトファンのレアコドンが優先的なTGGコドンに置きえられており、
アルギニンのレアコドンが優先的なCGTコドンに置き換えられており、および
グリシンのレアコドンが優先的なGGTコドンに置き換えられている方法。 - 前記目的のタンパク質を単離することを更に含む、請求項1に記載の方法。
- 前記植物から葉を採取して凍結乾燥することを更に含み、前記凍結乾燥葉が前記目的のタンパク質を含む、請求項1または2に記載の方法。
- 前記コドン最適化配列においてAT含量を増加させることをさらに含む、請求項1から3の何れか一項に記載の方法。
- 配列番号25の核酸によってコードされる合成ムタナーゼ酵素の製造のための、請求項1から4の何れか一項に記載の方法
- 請求項1から5の何れか一項に記載の方法を実施して目的のタンパク質を得ることを含む、目的のタンパク質の製造方法。
- 目的のタンパク質が配列番号4の核酸によってコードされる合成VP1タンパク質である、請求項6に記載の方法。
- 目的のタンパク質が配列番号25の核酸によってコードされる合成ムタナーゼ酵素である、請求項6に記載の方法。
- 抗VP1-IgG1力価及び抗VP1-IgA力価の産生を引き起こすためおよびポリオウイルスに対する免疫をブーストするための医薬を製造する方法であって、請求項1-4の何れかの方法を実施すること、および得られた合成VP1タンパク質を用いて医薬を得ることを含む、方法。
- う蝕の形成を阻害するための医薬を製造する方法であって、
請求項1-5の何れかの方法を実施して合成ムタナーゼ酵素を得ること、および得られた合成ムタナーゼ酵素を用いて医薬を得ることを含み、前記ムタナーゼが対象のプラーク形成を阻害する、方法。 - 前記ムタナーゼ酵素が抗菌ペプチドと融合され、及びチューインガムとして製剤化される、請求項10に記載の方法。
- 配列番号4または25に記載のポリヌクレオチドを含むプラスチド形質転換ベクター。
- 請求項12に記載のベクターで形質転換された植物であって、食用である植物。
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US201662310788P | 2016-03-20 | 2016-03-20 | |
| US62/310,788 | 2016-03-20 | ||
| PCT/US2017/023263 WO2017165320A1 (en) | 2016-03-20 | 2017-03-20 | Codon optimization and ribosome profiling for increasing transgene expression in chloroplasts of higher plants |
Publications (3)
| Publication Number | Publication Date |
|---|---|
| JP2019509064A JP2019509064A (ja) | 2019-04-04 |
| JP2019509064A5 JP2019509064A5 (ja) | 2020-04-02 |
| JP7145083B2 true JP7145083B2 (ja) | 2022-09-30 |
Family
ID=59899714
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2018568189A Active JP7145083B2 (ja) | 2016-03-20 | 2017-03-20 | 高等植物の葉緑体におけるトランス遺伝子発現を増加させるためのコドン最適化及びリボソームプロファイリング |
Country Status (6)
| Country | Link |
|---|---|
| US (1) | US11332754B2 (ja) |
| EP (1) | EP3432902B8 (ja) |
| JP (1) | JP7145083B2 (ja) |
| CN (1) | CN110603046B (ja) |
| CA (1) | CA3055900A1 (ja) |
| WO (1) | WO2017165320A1 (ja) |
Families Citing this family (6)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CN117224709A (zh) * | 2016-05-12 | 2023-12-15 | 宾夕法尼亚州立大学托管会 | 用于抑制生物膜沉积和产生的组合物和方法 |
| JP2021534754A (ja) * | 2018-08-22 | 2021-12-16 | ザ トラスティーズ オブ ザ ユニバーシティ オブ ペンシルバニア | レタス葉緑体で抗生物質フリーのバイオ医薬品を製造するための組成物および方法 |
| CN112195226B (zh) * | 2019-07-08 | 2022-05-24 | 清华大学 | 极小量细胞核糖体保护的rna片段测序的方法 |
| CN111635935A (zh) * | 2020-06-10 | 2020-09-08 | 华中农业大学 | 一种低成本、高通量间接量化蛋白表达水平的方法及其应用 |
| CN120266212A (zh) * | 2022-11-24 | 2025-07-04 | 南京金斯瑞生物科技有限公司 | 密码子优化 |
| CN117511978B (zh) * | 2024-01-08 | 2024-03-22 | 深圳粒影生物科技有限公司 | 一种提高外源蛋白表达量的方法 |
Citations (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2002526116A (ja) | 1998-10-07 | 2002-08-20 | シンジェンタ・パティシペーションズ・アクチェンゲゼルシャフト | 植物における治療活性タンパク質 |
| US20060253935A1 (en) | 1997-08-07 | 2006-11-09 | Henry Daniell | Expression of human serum albumin insulin in plastids |
| US20110179530A1 (en) | 2001-01-23 | 2011-07-21 | University Of Central Florida Research Foundation, Inc. | Pharmaceutical Proteins, Human Therapeutics, Human Serum Albumin Insulin, Native Cholera Toxin B Subunit on Transgenic Plastids |
Family Cites Families (17)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4946676A (en) * | 1986-08-27 | 1990-08-07 | De Staat Der Nederlanden | Vaccine comprising an immunogenic protein and, as an adjuvant, a substantially non-immunogenic, sequentially homologous peptide |
| JPH10201483A (ja) * | 1996-11-25 | 1998-08-04 | Lion Corp | ムタナーゼ遺伝子 |
| NL1009834C2 (nl) * | 1998-08-10 | 2000-02-11 | Stanislaus Laurens Johan Woute | Antistoffen voor toepassing in de gerichte en tijdelijke behandeling van mens en dier. |
| CN1886512A (zh) * | 2002-04-23 | 2006-12-27 | 斯克里普斯研究所 | 多肽在叶绿体中的表达以及用于表达多肽的组合物和方法 |
| JP2005185182A (ja) * | 2003-12-25 | 2005-07-14 | Lion Corp | α−1,3−グルコオリゴ糖の製造方法、該製造方法により得られるα−1,3−グルコオリゴ糖およびこれを含有する製剤組成物 |
| US8043833B2 (en) * | 2005-10-31 | 2011-10-25 | Novo Nordisk A/S | Expression of soluble therapeutic proteins |
| WO2007133558A2 (en) * | 2006-05-09 | 2007-11-22 | The Scripps Research Institute | Robust expression of a bioactive mammalian protein in chlamydomonas chloroplast |
| EP2134853B1 (en) * | 2007-04-03 | 2018-07-18 | Oxyrane UK Limited | Glycosylation of molecules |
| GB0911870D0 (en) | 2009-07-08 | 2009-08-19 | Ucl Business Plc | Optimised coding sequence and promoter |
| US8326547B2 (en) * | 2009-10-07 | 2012-12-04 | Nanjingjinsirui Science & Technology Biology Corp. | Method of sequence optimization for improved recombinant protein expression using a particle swarm optimization algorithm |
| US20120309939A1 (en) * | 2009-11-19 | 2012-12-06 | The Scripps Research Institute | Production of Therapeutic Proteins in Photosynthetic Organisms |
| EP3508573A1 (en) * | 2010-07-09 | 2019-07-10 | Bioverativ Therapeutics Inc. | Systems for factor viii processing and methods thereof |
| CN102146344A (zh) * | 2010-11-02 | 2011-08-10 | 上海师范大学 | 优化密码子提高外源基因表达量和莱茵衣藻制氢量的方法 |
| EP2770991B9 (en) * | 2011-10-24 | 2017-01-25 | The Trustees Of The University Of Pennsylvania | Orally-administered plastid expressed cholera toxin b subunit-exendin 4 for use in the treatment of type 2 diabetes |
| WO2013170031A1 (en) * | 2012-05-09 | 2013-11-14 | The Regents Of The University Of California | Method for in silico modeling of gene product expression and metabolism |
| FI3889173T3 (fi) * | 2013-02-15 | 2023-10-02 | Bioverativ Therapeutics Inc | Optimoitu tekijä viii:n geeni |
| PL3068869T3 (pl) * | 2013-11-15 | 2021-03-08 | The Trustees Of The University Of Pennsylvania | Kompozycje do hamowania wytwarzania inhibitorów przeciwko czynnikowi viii u pacjentów z hemofilią a |
-
2017
- 2017-03-20 WO PCT/US2017/023263 patent/WO2017165320A1/en not_active Ceased
- 2017-03-20 CN CN201780031137.5A patent/CN110603046B/zh active Active
- 2017-03-20 EP EP17770930.0A patent/EP3432902B8/en active Active
- 2017-03-20 CA CA3055900A patent/CA3055900A1/en active Pending
- 2017-03-20 JP JP2018568189A patent/JP7145083B2/ja active Active
- 2017-03-20 US US16/086,416 patent/US11332754B2/en active Active
Patent Citations (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US20060253935A1 (en) | 1997-08-07 | 2006-11-09 | Henry Daniell | Expression of human serum albumin insulin in plastids |
| JP2002526116A (ja) | 1998-10-07 | 2002-08-20 | シンジェンタ・パティシペーションズ・アクチェンゲゼルシャフト | 植物における治療活性タンパク質 |
| US20110179530A1 (en) | 2001-01-23 | 2011-07-21 | University Of Central Florida Research Foundation, Inc. | Pharmaceutical Proteins, Human Therapeutics, Human Serum Albumin Insulin, Native Cholera Toxin B Subunit on Transgenic Plastids |
Non-Patent Citations (2)
| Title |
|---|
| MURRAY, E. E. et al. ,Codon usage in plant genes,Nucleic Acids Res. ,1989年,Vol. 17, No. 2,P. 477-498 |
| Ribosome Profiling Enables Comprehensive Translation Analysis,[online],illumina Application Note:Sequencing,2010年,[令和3年2月15日検索],インターネット<URL:https://www.illumina.com/content/dam/illumina-marketing/documents/products/appnotes/appnote_riboseq.pdf> |
Also Published As
| Publication number | Publication date |
|---|---|
| CA3055900A1 (en) | 2017-09-28 |
| EP3432902A1 (en) | 2019-01-30 |
| CN110603046B (zh) | 2022-10-18 |
| CN110603046A (zh) | 2019-12-20 |
| WO2017165320A1 (en) | 2017-09-28 |
| US11332754B2 (en) | 2022-05-17 |
| US20190194679A1 (en) | 2019-06-27 |
| JP2019509064A (ja) | 2019-04-04 |
| EP3432902A4 (en) | 2019-08-28 |
| EP3432902B1 (en) | 2025-11-05 |
| EP3432902B8 (en) | 2025-12-17 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| EP3432902B1 (en) | Codon optimization and ribosome profiling for increasing transgene expression in chloroplasts of higher plants | |
| EP3551644B1 (en) | Chimpanzee adenovirus constructs with lyssavirus antigens | |
| US6448070B1 (en) | Polypeptides fused with alfalfa mosaic virus or ilarvirus capsid | |
| CN103890177B (zh) | Hpv嵌合颗粒 | |
| CN101820903A (zh) | 预防性和治疗性流感疫苗、抗原、组合物和方法 | |
| KR20160049061A (ko) | 헤마글루티닌을 발현하는 트랜스제닉 식물에서 생산된 재조합 인플루엔자 바이러스-유사 입자(VLPs) | |
| KR20080091759A (ko) | 신규 식물 바이러스 입자 및 그의 불활성화 방법 | |
| EP4205762A1 (en) | Improved dna vaccine for sars-cov-2 | |
| US20260014243A1 (en) | Crimean-congo hemorrhagic fever virus replicon particles and use thereof | |
| US20230144060A1 (en) | MERS-CoV VACCINE | |
| EP3359651A1 (en) | Human rota virus g9p[6]strain and use as a vaccine | |
| JP2023539356A (ja) | 改変コロナウイルス構造タンパク質 | |
| CA3110080A1 (en) | Compositions and methods for production of antibiotic free biopharmaceuticals in lettuce chloroplasts | |
| US20220275346A1 (en) | Hantavirus antigenic composition | |
| CN116925195B (zh) | 一种基于新型冠状病毒的mRNA疫苗 | |
| KR101680903B1 (ko) | 돼지 유행성 설사병 바이러스의 에피토프와 로타바이러스 유전자를 발현하는 형질전환체 및 이를 포함하는 백신 조성물 | |
| CN110382518B (zh) | 用于血清型a型口蹄疫病毒的嵌合疫苗 | |
| HK40017237B (en) | Codon optimization and ribosome profiling for increasing transgene expression in chloroplasts of higher plants | |
| HK40017237A (en) | Codon optimization and ribosome profiling for increasing transgene expression in chloroplasts of higher plants | |
| WO2013011942A1 (ja) | 変異狂犬病ウイルス及びワクチン | |
| KR101671528B1 (ko) | 돼지 유행성 설사병 바이러스의 에피토프와 점막면역보조제를 발현하는 형질전환체 및 이를 포함하는 백신 조성물 | |
| US20250277007A1 (en) | Cwp2 protein as an effective vaccine against clostridioides difficile infection | |
| US20240092840A1 (en) | Vaccine formulation comprising recombinant overlapping peptides and native proteins | |
| CN120860196B (zh) | 一种猪流行性腹泻mRNA疫苗及其制备方法 | |
| Chan et al. | Production and Characterization of Dimeric Spike Truncatednodavirus Capsid Displaying the Receptor-binding Domain of Severe Acute Respiratory Syndrome Coronavirus-2. |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20181016 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20200221 |
|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20200221 |
|
| A977 | Report on retrieval |
Free format text: JAPANESE INTERMEDIATE CODE: A971007 Effective date: 20210217 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20210309 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20210604 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20210804 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20220105 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20220401 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20220517 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20220816 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20220906 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20220916 |
|
| R150 | Certificate of patent or registration of utility model |
Ref document number: 7145083 Country of ref document: JP Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |