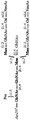푸코실화 항체의 분리 방법 {SEPARATION METHOD FOR FUCOSYLATED ANTIBODIES}
본 발명은 항체, 특히 상이한 푸코실화 정도 (fucosylation degree) 를 갖는 항체의 분리 방법에 관한 것이다. 본 방법은 Fc 수용체에 대한 항체의 결합 친화도를 기초로 한다. 본 발명은 또한 상이한 푸코실화 정도를 갖는 항체의 분리를 위한 Fc 수용체의 용도에 관한 것이다.
인간 IgG1 은 항체 의존성 세포매개 세포독성 (ADCC) 및 보체-의존성 세포독성 (CDC) 과 같은 면역 효과기 기능을 매개하고 면역계의 성분들과 상호작용하는 불변 Fc (fragment crystallizable; 결정가능 단편) 도메인 및 항원 인지를 담당하는 가변 영역을 포함하는 2 개의 Fab (fragment antigen binding; 단편 항원 결합) 단편으로 이루어진다. 불변 영역의 CH2 도메인 내 아스파라긴 297 (Asn297, N297) 에서 보존된 N-글리코실화 부위에 부착된 탄수화물 구조가 이들 효과기 기능 을 매개하는데 필수적이다 (1-4).
자연적으로, Fc 도메인에 부착된 올리고당은 주로, 2등분 GlcNAc (N-아세틸글루코사민), 말단 갈락토오스, 중심 푸코오스 및 시알산의 함량이 다양한 바이안테너리 (biantennary) 착물-유형의 구조이다 (도 1).
최근의 연구가, 탄수화물 조성의 개질이 항체-매개 면역 효과기 기능에 크게 영향을 미친다는 점을 밝혀냈다 (3-5). 낮은 수준의 갈락토실화는 긍정적으로 보체 활성화에 영향을 미치는 반면에, 중심 푸코오스의 결여는 FcγRIIIa 의 높은 결합 친화도를 도모하며, 그에 따라 ADCC 를 증강시킨다 (5-7). 글리코실화 프로파일을 조작하고, 생물학적 기능이 개선된 치료적 항체를 제조하도록 몇몇의 접근법을 개발하였다 (8-10).
예를 들어, β(1,4)-N-아세틸글루코사미닐트랜스퍼라아제 (GnT) III 및 만노시다아제 (Man) II 를 과발현하는 포유동물 세포에서 당조작된 (glycoengineering) 항체는 높은 비율의 이등분된 비(非)푸코실화 올리고당을 특징으로 하여, 50-배 이하로 높은 FcγRIIIa 의 친화도에 따라 그 결과로서 증강된 ADCC 를 촉진시킨다 (9). 그러나, 푸코실화 반응을 억제하는 GnT III 의 과발현에 의해 도입된 탄수화물 개질은 단지 부분적인 비(非)푸코실화 항체만을 도모한다. IgG 분자의 Fc 도메인은 2 개의 N-링크된 글리코실화 부위를 가지므로, 푸코실화 반응의 부분적인 억제는 항체 풀 (pool) 내에서 다양한 푸코오스 분포를 도모할 수 있다. 이러한 항체 제제는 1 또는 2 개의 푸코오스 잔기를 갖는 반면 이들 일부가 완전히 비푸코실화된 분자의 혼합물을 포함할 것이다. 명확하게도, 이러한 상이한 비푸코실화 정도는 FcγRIIIa 에 대한 전반적인 친화도에 영향을 미치고, 그 결과 상이한 생물학적 활성을 야기시킨다. 따라서, 상기 항체 풀의 상세한 특성화가 필수적이다.
푸코실화 IgG 와 비푸코실화 IgG 간 FcγRIIIa 의 친화도 차이는 50-배 이하이므로, 상기 상호작용을 이용해 항체 풀에서 상이하게 푸코실화된 종들을 분리하고 이들을 독립적으로 특성화할 수 있다.
IgG 정제에 사용된 기존의 친화도 크로마토그래피 기질은, 고정화된 포획 단백질이 항체의 단백질 백본 (backbone) 에 특이적으로 결합하므로, IgG 풀 내에서 상이한 글리코실화 패턴들은 구별할 수 없었다. 예를 들어, 단백질 A 및 단백질 G 는 Fc 영역의 CH2 및 CH3 도메인 사이 접점에서 결합하는 반면, 단백질 L 등의 다른 IgG 특이적 단백질은 카파 경쇄의 불변부를 인지한다 (11-13).
특이적 글리칸 구조를 갖는 단백질을 풍부하게 하기 위해, 예를 들어 푸코오스-함유 글리칸을 결합하는 알레우리아 아우란티아 렉틴 (AAL) 을 이용하는 레시틴 친화도 크로마토그래피가 이용된 바 있다 (14). 다르게는, 특이적 탄수화물 구조를 인지하는 글리칸-표적 항체, 예를 들어 Lewis x 항원에 대해 특이적인 항체가 사용된 바 있다 (15). 이들 방법은 특정 탄수화물을 보유하는 당단백질을 부유하게 하는데 적절할 수 있으나, 이들은 비푸코실화 항체와 같이 특정 탄수화물이 결여된 당단백질의 부유화에서 사용되기에는 제한적이다. 더욱이, 이들 방법중 어느 것도 항체에 특이적이지 않으므로, 표적된 글리칸 구조를 갖는 기타 단백질에 의한 오염을 피하기 위해서는 친화도 기질로 적용하기 이전에 항체 풀의 엄격한 정제를 요구한다. 최종적으로, 이들 방법은 수득하기 어려울 수 있는 특이적 레시틴 또는 항체에 의존하므로, 제조 목적에 부응되게 성공적으로 사용된 바 없다.
실험적 목적뿐 아니라 치료적 목적에 흥미로운 면역 효과기 기능을 유도하는데 있어서, 이의 매우 증대된 잠재성을 고려해볼 때, 항체 풀에 존재하는 완전 푸코실화 항체로부터 부분 또는 완전 비푸코실화 항체를 분리하는 것이 바람직할 수 있다. 본 발명은 이러한 분리를 달성하기 위한 간단하고 효율적인 방법을 제공한다.
본 발명의 기술
본 발명은 푸코실화 항체와 (부분 또는 완전) 비푸코실화 항체를 구별하기 위한 FcγRIIIa 등의 특정 Fc 수용체의 능력을 기초로 하는 분리 방법을 제공한다. 당해 방법은 분석적인 목적뿐 아니라 제조 목적에 맞게 항체 풀로부터 상이하게 푸코실화된 항체들을 분리하하는데 고정된 Fc 수용체를 이용한다. 본원에서 기술된 방법은 항체 풀의 탄수화물 조성을 특성화는데 분석적으로 적용될 수 있다. 당해 방법으로 다수의 샘플을 스크리닝할 수 있으므로, 예를 들어 고함량의 비푸코실화 올리고당을 갖는 당조작된 항체를 생성하는 숙주 세포를 선택하는데 사용될 수 있다. 제조적 적용은 완전 비푸코실화 또는 완전 푸코실화 항체 모집단 (population) 의 제조를 허용해, 이의 상이한 FcγRIIIa 결합 특성 및 생물학적 활성을 특성화할 수 있다.
제 1 측면에서, 본 발명은 하기의 단계를 포함하는, 상이한 푸코실화 정도를 갖는 항체의 분리 방법을 제공한다:
a) 항체의 모집단을 제공하고,
b) 지지체 상 고정된 Fc 수용체와 상기 항체 모집단을 접촉하고,
c) 상기 Fc 수용체에 특이적으로 결합하지 않은 항체를 용리하고, 및
d) 상기 Fc 수용체에 특이적으로 결합하는 항체를 용리함.
특정 구현예에서, 항체는 IgG 항체, 더욱 특히 IgG1 항체이다. 일부 구현예에서, 항체는 인간 Fc 영역을 포함한다. 하나의 구현예에서, 항체는 글리코실화 항체이다. 특정 구현예에서, 항체는 당조작되어 그의 Fc 영역에서 변경된 올리고당을 갖는다. 보다 더욱 특정 구현예에서, 항체는 당조작되어 상응하는 비(非)당조직화된 항체와 비교시 그의 Fc 영역 내 증가된 비율의 비푸코실화 올리고당을 갖는다. 하나의 구현예에서, 항체는 비(非)조작된 숙주 세포와 비교시, 증가된 β(1,4)-N-아세틸글루코사미닐트랜스퍼라아제 (GnT) III 활성을 갖도록 조작된 숙주 세포에서 생성된 바 있다. 더욱 특정한 구현예에서, 숙주 세포는 추가적으로 조작되어 증대된 α-만노시다아제 II (ManII) 활성을 갖는다. 증가된 GnTIII 활성은, 전형적으로, 숙주 세포에 GnTIII 활성을 갖는 하나 이상의 폴리펩티드, 즉 N-링크된 올리고당의 트리만노실 중심의 β-링크된 만노시드로의, β-1,4 결합으로 N-아세틸글루코사민 (GlcNAc) 의 첨가를 촉매 작용할 수 있는 폴리펩티드를 인코딩하는 하나 이상의 폴리뉴클레오티드의 도입에 의한 것이다. 이것은 용량에 의존 또는 그렇지 않고서, 특정 생물학적 검정에서 측정된 바와 같이, [Nomenclature Committee of the International Union of Biochemistry and Molecular Biology (NC-IUBMB)] 에 따르면, β-1,4-만노실-당단백질 4-베타-N-아세틸글루코사미닐-트랜스퍼라아제 (EC 2.4.1.144) 로서 공지되어 있기도 한, β(1,4)-N-아세틸글루코사미닐트랜스퍼라아제 III 의 활성과 유사한, 그러나 반드시 동일하지는 않은 효소 활성을 나타내는 융합 폴리펩티드를 포함한다. 특정 구현예에서, GnTIII 활성을 갖는 폴리펩티드는 이종 골지 (Golgi) 거주 폴리펩티드의 골지 국소화 도메인 및 GnTIII 의 촉매 도메인을 포함하는 융합 폴리펩티드이다. 특히, 골지 국소화 도메인은 만노시다아제 II 또는 GnTI 의 국소화 도메인, 가장 특히 만노시다아제 II 의 국소화 도메인이다. 대안적으로, 골지 국소화 도메인은 하기로 이루어진 군으로부터 선택된다: 만노시다아제 I 의 국소화 도메인, GnTII 의 국소화 도메인, 및 α1,6 중심 푸코실트랜스퍼라아제의 국소화 도메인. 그의 Fc 영역 내 증대된 비푸코실화 올리고당의 비율을 갖도록 항체를 당조작하는데 사용될 수 있는 당조작 방법은, 본원에서 명백히 그 전문이 참조로서 혼입되어 있는 [Umana et al., Nat Biotechnol 17, 176-180 (1999); Ferrara et al., Biotechn Bioeng 93, 851-861 (2006)] 및 PCT 공보 WO 99/54342, WO 2004/065540 및 WO 03/011878 에 기술되어 있다.
특정 구현예에서, 항체에 대한 Fc 수용체의 결합 친화도는 항체의 푸코실화 정도에 의존한다. 특정 상기와 같은 구현예에서, 항체에 대한 Fc 수용체의 결합 친화도는 항체의 푸코실화 정도와 더불어 감소된다. 한 구현예에서 특히 항체가 IgG 항체인 경우, Fc 수용체는 Fcγ 수용체이다. 특정 구현예에서, Fc 수용체는 FcγRIIIa 이다. 더욱 특정한 구현예에서, Fc 수용체는 FcγRIIIa(V158) 이다. 일부 구현예에서, 특히 항체가 인간 Fc 영역을 포함하는 경우, Fc 수용체는 인간이다. 한 구현예에서, Fc 수용체는 재조합 Fc 수용체 (즉, Fc 수용체는 재조합 제조에 의해 수득됨) 이다.
한 구현예에서, Fc 수용체가 고정되어 있는 지지체는 중합체 기질이다. 중합체 기질은 전형적으로 비드 (beaded) 형태이다. 한 구현예에서, 중합체 기질은 가교 아가로오스 또는 그의 유도체이다. 특정 구현예에서, 중합체 기질은 Sepharose® (가교 아가로오스, GE Healthcare, Uppsala, Sweden 에서 입수가능) 이다. 또 다른 구현예에서, 중합체 기질은 가교 폴리(스티렌-디비닐벤젠)이다. 특정 구현예에서, 중합체 기질은 POROS® (가교 폴리(스티렌-디비닐벤젠), Applied Biosystems, Foster City, USA 에서 입수가능) 이다. Fc 수용체는 다양한 방식으로 지지체 상에 고정될 수 있다. 당업자는 지지체의 특성을 바탕으로 적합한 고정 방법을 용이하게 결정할 수 있을 것이다. 예를 들어, 중합체 기질 상 고정화는 기질 내 포함되어 있는 관능기 (예, 히드록실기, 알데히드기, 에폭시드기) 로 고정되는 단백질의 화학 반응을 통해 달성되는 것이 전형적이다. 적합한 중합체 기질뿐 아니라 커플링 화학법 및 프로토콜도 익히 당업계에 공지되어 있다. 2 종의 상이한 지지체 상 고정화를 또한 하기의 실시예에 기술한다. 한 구현예에서, 지지체는 세포 또는 세포막이 아니다. 특정 구현예에서, 상기 방법은 크로마토그래피 방법이다. 하나의 이러한 구현예에서, 지지체가 크로마토그래피 컬럼에 포함된다. 하나의 이러한 구현예에서, 항체 모집단의 Fc 수용체와의 접촉은 항체 모집단을 크로마토그래피 컬럼에 통과시킴으로써 행해진다.
특정 구현예에서, 항체의 모집단은 정제된다. 특정 구현예에서, 항체의 모집단은 친화도 정제, 특히 단백질 A 또는 단백질 G 를 이용해 친화도 정제된다. 친화도 정제란 예를 들어 친화도 기질과 항체 모집단을 인큐베이션하는 것에 의한 배치식 (batch) 정제로서, 또는 친화도 기질 정지상에 걸쳐 항체 모집단 이동상을 통과시키는 것에 의한 크로마토그래피 정제로서 실시될 수 있다. 한 구현예에서, 항체 모집단은 친화도 그래피에 의해 정제된다. 더욱 특정한 구현예에서, 항체 모집단은 단밸질 A 또는 단백질 G 친화도 크로마토그래피에 의해, 특히 단백질 A 친화도 크로마토그래피에 의해 정제된다. 기타 구현예에서, 항체 모집단은 크기 배제 크로마토그래피에 의해, 또는 친화도 크로마토그래피와 크기 배제 크로마토그래피의 조합에 의해 정제된다.
한 구현예에서, 항체의 모집단은 용액 중 제공된다. 더욱 특정한 구현예에서, 항체의 모집단은 버퍼 용액 중 제공된다. 한 구현예에서, 버퍼 용액은 pH 값이 약 7.0 내지 약 8.5, 특히 pH 값이 약 8 이다. 한 구현예에서, 버퍼 용액은 Tris 버퍼 용액이다. 보다 더욱 특정한 구현예에서, 버퍼 용액은 10 mM Tris, 50 mM 글리신, 100 mM NaCl, pH 8, 또는 20 mM Tris, 20 mM MOPS (3-(N-모르폴리노)프로판술폰산), 20 mM 나트륨 시트레이트, 100 mM NaCl, pH 8 이다. 일부 구현예에서, 항체 모집단의 Fc 수용체와의 접촉은 버퍼 용액에서 행해진다. 특정 이러한 구현예에서, 버퍼 용액은 항체 모집단이 제공되어 있는 버퍼 용액과 동일하다. 한 구현예에서, 항체 모집단은 단백질 A 또는 단백질 G 친화도 크로마토그래피, 특히 단백질 A 친화도 크로마토그래피로써 정제되고, Fc 수용체와의 접촉은 항체 모집단이 상기 친화도 크로마토그래피 (단백질 A 로부터 용리 후 항체 용액의 중화 포함) 후 수득되는 동일 버퍼 용액에서 행해진다. 특정 구현예에서, 항체 모집단의 정제와 Fc 수용체와의 접촉 사이에서 중간 단계는 요구되지 않는다.
일부 구현예에서, 상기 방법은 추가로 하기의 단계를 포함한다:
c1) 지지체 세정.
한 구현예에서, 상기 세정은, Fc 수용체와의 항체의 특이적 결합을 유지시키는 버퍼 용액과 지지체를 접촉시킨 후, 상기 버퍼 용액을 제거하는 것을 포함한다. 한 구현예에서, 버퍼 용액은 pH 값이 약 7.0 내지 약 8.5 이고, 특히 pH 값은 약 8 이다. 한 구현예에서, 버퍼 용액은 Tris 버퍼 용액이다. 보다 더욱 특정한 구현예에서, 버퍼 용액은 10 mM Tris, 50 mM 글리신, 100 mM NaCl, pH 8, 또는 20 mM Tris, 20 mM MOPS (3-(N-모르폴리노)프로판술폰산), 20 mM 나트륨 시트레이트, 100 mM NaCl, pH 8 이다. 한 구현예에서, 상기 버퍼 용액은 항체가 제공되는 버퍼 용액과 동일한 것이다. 한 구현예에서, 동일 버퍼 용액은 그 내부에 항체의 (정제된) 모집단을 제공하는데 (단계 a), 항체의 모집단을 Fc 수용체와 접촉하는데 (단계 b), 수용체에 특이적으로 결합하지 않는 항체를 용리하는데 (단계 c), 지지체를 세정하는데 (단계 c1) 사용된다.
특정 구현예에서, 본 방법은 항체의 대다수가 항체 Fc 영역의 2 개의 N-글리칸 중 어디에도 푸코오스 잔기를 포함하지 않거나, 그 중 하나 또는 양쪽 모두에서 푸코오스 잔기를 포함하는 항체 하위(sub)-모집단의 분리를 허용한다. 추가의 특정 구현예에서, 본 방법은 푸코실화 정도가 90% 이상, 바람직하게 95% 이상인 항체, 푸코실화 정도가 20% 미만, 바람직하게 10% 미만인 항체, 및 푸코실화 정도가 약 10% 내지 75%, 바람직하게 약 20% 내지 60% 인 항체의 분리를 허용한다. 한 구현예에서, 본 방법은 부분 푸코실화 및 완전 비푸코실화된 항체로 본질적으로 이루어진 항체 하위-모집단의 분리에 적합하다. 한 구현예에서, 본 방법은 항체 Fc 영역의 2 개의 N-글리칸 중 어떤 곳에서도 푸코오스 잔기를 포함하지 않거나 또는 그 중 하나에서 푸코오스 잔기를 포함하는 항체로 본질적으로 이루어진 항체 하위-모집단의 분리에 적합하다. 한 구현예에서, 본 방법은 항체 Fc 영역의 2 개의 N-글리칸 중 모두에서 푸코오스 잔기를 포함하는 항체가 본질적으로 없는 항체 하위-모집단의 분리에 적합하다.
특정 구현예에서, 본 방법은 분석적 목적을 위한 것이다. 기타 구현예에서, 본 방법은 제조적 목적을 위한 것이다.
특정 구현예에서, 본 방법은 추가로 하기의 단계를 포함한다:
e) 단계 c) 및/또는 단계 d) 의 용리된 항체의 수집.
일부 구현예에서, 본 방법은 추가로 하기의 단계를 포함한다:
f) 실험적 또는 치료적 목적을 위해 수집된 항체를 이용함.
한 구현예에서, 용리된 항체는 280 nm 의 파장에서 UV 흡광도를 측정함으로써 검출된다.
한 구현예에서, 단계 c) 의 용리는 단계 b) 에서의 접촉 이후 항체 모집단에서 유리된 채 있는 항체의 분리를 포함한다. 지지체가 크로마토그래피 컬럼에 포함되어 있고, 항체 모집단의 Fc 수용체와의 접촉을, 항체 모집단의 크로마토그래피 컬럼 통과를 통해 행해지는 경우, 단계 c) 에서 용리된 항체는 크로마토그래피 컬럼의 통과액에서 발견된다. 한 구현예에서, 단계 c) 에서 용리된 항체는 완전 푸코실화 항체이다. 더욱 특정한 구현예에서, 단계 c) 에서 용리된 항체는 90% 이상, 바람직하게 95% 이상의 푸코실화 정도를 갖는다. 한 구현예에서, 단계 c) 에서 용리된 대다수의 항체는 항체 Fc 영역의 2 개의 N-글리칸 각각에서 푸코오스 잔기를 포함한다.
특정 구현예에서, 단계 d) 의 용리는, 항체의 Fc 수용체와의 결합을 방해하는 버퍼 용액과 지지체를 접촉시키는 것을 포함한다. 이러한 한 구현예에서, 버퍼 용액의 pH 값의 범위는 약 3 내지 약 5, 바람직하게 약 4 내지 약 5 이다. 한 구현예에서, 버퍼 용액은 Tris 버퍼 용액이다. 한 구현예에서, 단계 d) 에서 용리된 항체는 부분 푸코실화 및/또는 완전 비푸코실화 항체이다. 보다 특정한 구현예에서, 단계 d) 에서 용리된 항체는 푸코실화 정도가 90% 미만, 바람직하게 75% 미만, 가장 바람직하게 60% 미만이다. 한 구현예에서, 단계 d) 에서 용리된 항체의 대다수는 항체 Fc 영역내 2 개의 N-글리칸 중 하나에서 푸코오스 잔기를 포함하거나, 그 중 어디에도 푸코오스 잔기를 포함하지 않는다.
특정 구현예에서, 단계 d) 의 용리는 상이한 pH 값에서 행해진다. 한 구현예에서, pH 값의 범위는 약 3 내지 약 5, 바람직하게 약 4 내지 약 5 이다. 특정 구현예에서, pH 값은 4.6 및 4.2 를 포함한다. 또다른 특정 구현예에서, 단계 d) 의 용리는 부분 푸코실화 항체 및 완전 비푸코실화 항체의 분리를 허용한다. 보다 특정한 구현예에서, 단계 d) 의 용리는 푸코실화 정도가 20% 미만, 바람직하게 10% 미만인 항체, 및 푸코실화 정도가 약 10% 내지 75%, 바람직하게 약 20% 내지 60% 인 항체의 분리를 허용한다. 또한 또 다른 특정 구현예에서, 단계 d) 의 용리는 대다수의 항체가 항체 Fc 영역의 2 개의 N-글리칸 중 하나에서 푸코오스 잔기를 포함하거나, 또는 대다수의 항체가 항체 Fc 영역의 2 개의 N-글리칸 중 어디에도 푸코오스 잔기를 포함하지 않는 항체 하위-모집단의 분리를 허용한다. 일부 구현예에서, 단계 d) 의 용리는 지지체를, 상이한 푸코실화 정도를 갖는 항체의 Fc 수용체와의 결합을 방해하는 일련의 버퍼 용액과 연속적으로 접촉시킴으로써 행해진다. 특정 이러한 구현예에서, 버퍼 용액은 상이한 pH 값을 지닌다. 한 구현예에서, pH 값은 약 3 내지 약 5, 바람직하게 약 4 내지 약 5 의 범위이다. 특정 구현예에서, pH 값은 4.6 및 4.2 를 포함한다. 한 구현예에서, 버퍼 용액은 Tris 버퍼 용액이다. 더욱 특정한 구현예에서, 버퍼 용액은 10 mM Tris, 50 mM 글리신, 100 mM NaCl, 또는 20 mM Tris, 20 mM MOPS (3-(N-모르폴리노)프로판술폰산), 20 mM 나트륨 시트레이트, 100 mM NaCl (상이한 pH 값을 지님) 이다.
추가 측면에서, 본 발명은 상이한 푸코실화 정도를 갖는 항체의 분리 방법에서 Fc 수용체의 용도를 포함한다. 한 측면에서, 본 발명은 본원에서 기재된 본 발명의 방법에서 Fc 수용체의 용도를 제공한다. 한 구현예에서, Fc 수용체는 Fcγ 수용체이다. 특정 구현예에서, Fc 수용체는 FcγRIIIa 이다. 보다 특정한 구현예에서, Fc 수용체는 FcγRIIIa(V158) 이다. 한 구현예에서, Fc 수용체는 인간이다. 추가 구현예에서, Fc 수용체는 재조합 Fc 수용체이다. 특정 구현예에서, Fc 수용체는 지지체 상에서 고정되어 있다. 지지체는 임의의 특징들을 단독으로 또는 조합해서 본 발명의 방법에서 사용된 지지체와 관련된 앞선 문단에 기술된 바와 같이 통합할 수 있다.
또 다른 측면에서, 본 발명은 본 발명의 방법과 같은 상이한 푸코실화 정도를 갖는 항체의 분리 방법에서 사용하기 위한 지지체 상에 고정된 Fc 수용체를 제공한다. 한 구현예에서, Fc 수용체는 Fcγ 수용체이다. 특정 구현예에서, Fc 수용체는 FcγRIIIa 이다. 보다 특정한 구현예에서, Fc 수용체는 FcγRIIIa(V158) 이다. 한 구현예에서, Fc 수용체는 인간이다. 추가 구현예에서, Fc 수용체는 재조합 Fc 수용체이다. 지지체는 임의의 특징들을 단독으로 또는 조합해서 본 발명의 방법에서 사용된 지지체와 관련된 앞선 문단에 기술된 바와 같이 통합할 수 있다.
하기와 같이 달리 정의되지 않는 한 당업계에서 일반적으로 사용되는 바와 같은 용어가 본원에서 사용된다.
용어 "항체"란, 가장 광범위한 의미에서 사용되고, 모노클로날 항체, 폴리클로날 항체, 다중특이적 항체 (예, 이중특이적 항체) 및, 항체 단편 (면역글로불린의 Fc 영역 또는 면역글로불린의 Fc 영역과 등가인 영역을 포함하는 경우) 을 비롯해 다양한 항체 구조를 포함한다. 상기 용어는 또한 면역글로불린의 Fc 영역과 등가인 영역 또는 Fc 영역을 포함하는 융합 단백질도 포함한다.
용어 "면역글로불린"은 천연 발생 항체의 구조를 갖는 단백질을 지칭한다. 예를 들어, IgG 클래스의 면역글로불린은 2 개의 경쇄 및 2 개의 중쇄 (디술파이드-결합됨) 로 이루어진 약 150,000 달톤의 헤테로테트라머 당단백질이다. N-말단부터 C-말단 방향으로, 각 중쇄는 가변 영역 (VH; 또한 가변 중쇄 도메인 또는 중쇄 가변 도메인이라고도 지칭됨) 다음 경첩 영역 (HR) 및 3 개의 불변 도메인 (CH1, CH2, 및 CH3; 또한 중쇄 불변 영역으로도 지칭됨) 을 갖는다. IgE 클래스 면역글로불린의 경우에서, 중쇄는 추가적으로 CH4 도메인을 가진다. 따라서, 면역글로불린 중쇄는 N-말단에서 C-말단의 방향으로 하기의 도메인으로 이루어진 폴리펩티드이다: VH-CH1-HR-CH2-CH3-(CH4). 마찬가지로, N-말단에서 C-말단 방향으로, 각 경쇄는 가변 영역 (VL; 또한 가변 경쇄 도메인 또는 경쇄 가변 도메인이라고도 지칭됨) 다음 불변 경쇄 (CL) 도메인 (또한 경쇄 불변 영역이라고 지칭됨) 을 갖는다. 따라서, 면역글로불린 경쇄는 N-말단에서 C-말단 방향으로 하기의 도메인으로 이루어진 폴리펩티드이다: VL-CL. 면역글로불린의 중쇄는 α(IgA), δ(IgD), ε(IgE), γ (IgG), 또는 μ(IgM) (이들 중 일부는 추가로 하위 서브타입: 예를 들어, γ1 (IgG1), γ2 (IgG2), γ3 (IgG3), γ4 (IgG4), α1 (IgA1) 및 α2 (IgA2) 로 나뉨) 로 불리는 5 타입 중 하나에 배정될 수 있다. 면역글로불린의 경쇄는 불변 도메인의 아미노산 서열을 기준으로 카파 (κ) 및 람다 (λ) 로 불리우는 2 타입중 하나에 배정될 수 있다. 면역글로불린은 면역글로불린 중첩 영역을 통해 연결된, 2 개의 Fab 단편 및 Fc 영역으로 본질적으로 이루어져 있다.
항체 또는 면역글로불린의 "클래스"는 그의 중쇄에 보유된 불변 도메인 또는 불변 영역의 타입을 지칭한다. 5 개의 주요 클래스의 항체가 존재하고: IgA, IgD, IgE, IgG, 및 IgM, 이들 중 몇몇은 추가로 하위클래스 (아이소타입) 로 나뉘어질 수 있다: 예를 들어, IgG1, IgG2, IgG3, IgG4, IgA1, 및 IgA2. 상이한 클래스의 항체에 해당하는 중쇄 불변 도메인은 각각 α, δ, ε, γ, 및 μ 로 지칭된다.
용어 "Fc 영역" 또는 "Fc 도메인" 은 불변 영역의 적어도 일부를 포함하는 면역글로불린 중쇄의 C-말단 영역을 정의하는데 사용된다. 상기 용어는 천연 시퀀스 Fc 영역 및 변이체 Fc 영역을 포함한다. IgG 중쇄의 Fc 영역의 경계는 약간 다양할 수 있으나, 인간 IgG 중쇄 Fc 영역은 통상 Cys226 또는 Pro230 에서부터 중쇄의 카르복실-말단까지 포괄하도록 정의되는 것이 통상적이다. 그러나, Fc 영역의 C-말단 리신 (Lys447) 은 존재하거나 또는 존재하지 않을 수 있다. 본원에서 달리 명기하지 않는 한, Fc 영역 또는 불변 영역 내 아미노산 잔기의 넘버링은 문헌 [Kabat et al., Sequences of Proteins of Immunological Interest, 5th Ed. Public Health Service, National Institutes of Health, Bethesda, MD, 1991] 에 기재된 바와 같이, 소위 EU 지수라고 불리우는 EU 넘버링 시스템에 따른다.
"면역글로불린의 Fc 영역에 등가인 영역"이란, 면역글로불린의 Fc 영역의 천연 발생 대립 변이체뿐 아니라, 치환, 부가 또는 결실의 변경을 가지나 효과기 기능 (예, 항체 의존성 세포매개 세포독성) 을 매개하는 면역글로불린의 능력은 실질적으로 감소시키지 않는 변이체를 포함하는 것으로 의도된다. 예를 들어, 하나 이상의 아미노산은 생물학적 기능의 실질적인 손실 없이 면역글로불린의 Fc 영역의 N-말단 또는 C-말단으로부터 결실될 수 있다. 이러한 변이체는 활성에 대해 최소한의 영향을 미치게 당업계에 공지된 일반적인 규칙에 따라 선택될 수 있다 (예, Bowie et al., Science 247, 1306-10 (1990) 참고).
용어 "푸코실화"는 항체의 펩티드 백본에 부착된 올리고당 내 푸코오스 잔기의 존재를 지칭한다. 구체적으로, 푸코실화 항체는 항체 Fc 영역에 부착된 N-링크된 올리고당의 1 또는 둘 모두에서 가장 안쪽의 N-아세틸글루코사민 (GlcNAc) 잔기에서, 예를 들어 인간 IgG1 Fc 도메인의 위치 Asn297 에서 (Fc 영역 잔기의 EU 넘버링), α(1,6)-링크된 푸코오스를 포함한다. Asn297 은 또한 위치 297 의 상향 또는 하향으로 약 ± 3 아미노산에, 즉 면역글로불린 내 작은 서열 변경으로 인해 위치 294 내지 300 사이에 위치될 수 있다.
"푸코실화 정도"란 MALDI TOF MS 에 의해, N-글리코시다아제 F 처리된 항체 샘플에서 동정된 모든 올리고당에 비한 푸코실화 올리고당의 백분율이다. "완전 푸코실화 항체"의 샘플에서, 본질적으로 모든 올리고당은 푸코오스 잔기를 포함하고, 즉 모든 올리고당은 푸코실화된다. 한 구현예에서, 완전 푸코실화 항체는 90% 이상의 푸코실화 정도를 갖는다. 따라서, 상기와 같은 샘플 내 각 항체는 전형적으로 Fc 영역 내 2 개의 N-링크된 올리고당 각각에서 푸코오스 잔기를 포함한다. 반대로, "완전 비푸코실화 항체"의 샘플에서는, 본질적으로 올리고당 중 어떤 것도 푸코실화되지 않고, 이러한 샘플 내 각 항체는 Fc 영역 내 2 개의 N-링크된 올리고당 중 어디에도 푸코오스 잔기를 포함하지 않는다. 한 구현예에서, 완전 비푸코실화 항체는 10% 미만의 푸코실화 정도를 가진다. "부분 푸코실화 항체"의 샘플에서, 올리고당의 단지 일부만이 푸코오스를 포함한다. 상기 샘플에서, 각 항체는 Fc 영역 내 N-링크된 올리고당 중 어디에도 푸코오스 잔기를 포함하지 않을 수 있거나, 또는 그 중 하나 또는 양자 모두에 푸코오스 잔기를 포함할 수 있으나, 단 본질적으로 샘플의 모든 각 항체는 Fc 영역 내 N-링크된 올리고당 중 어디에도 푸코오스 잔기를 포함하지 않든 것도, 본질적으로 샘플의 모든 각 항체가 Fc 영역 내 N-링크된 올리고당 중 양자 모두에 푸코오스 잔기를 포함하는 것도 아닌 점을 조건으로 한다. 한 구현예에서, 부분 푸코실화 항체는 푸코실화 정도가 약 10 내지 약 75% 이다.
본원에서 이용된 바, 용어 "당조작, 당조작된, 당조작한" 이란, 폴리펩티드의 글리코실화 패턴을 변경하는 천연 발생 또는 재조합 폴리펩티드 또는 그의 단편의 번역후 개질 또는 펩티드 백본의 임의의 조작을 지칭한다. 당조작은, 아미노산 서열, 각 아미노산의 측쇄기 또는 올리고당 구조의 개질뿐 아니라 이들 접근법의 조합을 포함한다. 당조작은 또한 올리고당 합성 경로의 유전적 조작으로 세포에서 발현되는 당단백질의 변경된 글리코실화를 달성하는 것을 포함하는, 세포의 글리코실화 조직의 대사적 공학조작을 포함한다. 또한, 당조작은 글리코실화에 대한 돌연변이 및 세포 환경의 작용을 포함한다. 한 구현예에서, 당조작된 항체는 그 항체를 생성하는 숙주 세포에서 글리코실트랜스퍼라아제 활성 변경으로부터 도모된다. 글리코실트랜스퍼라아제에는 예를 들어 β(1,4)-N-아세틸글루코사미닐트랜스퍼라아제 III (GnTIII), β(1,4)-갈락토실트랜스퍼라아제 (GalT), β(1,2)-N-아세틸글루코사미닐트랜스퍼라아제 I (GnTI), β(1,2)-N-아세틸글루코사미닐트랜스퍼라아제 II (GnTII) 및 α(1,6)-푸코실트랜스퍼라아제가 포함된다. 특정 구현예에서, 당조작된 항체는 그 항체를 생성하는 숙주 세포에서 변경된 글루코사미닐트랜스퍼라아제 활성 및/또는 푸코실트랜스퍼라아제 활성으로부터 도모된다. Fc 영역 내 증가된 비율의 비푸코실화 올리고당을 가진 항체는, 예를 들어 증가된 β(1,4)-N-아세틸글루코사미닐트랜스퍼라아제 III (GnTIII) 활성을 가진, 임의로는 추가적으로 증가된 만노시다아제 II (ManII) 활성을 가진 숙주 세포에서 또는 감소된 α(1,6) 푸코실트랜스퍼라아제 활성을 가진 숙주 세포에서 항체를 생성시킴으로써 수득할 수 있다.
"FcγRIIIa (V158)" 은 아미노산 위치 158 에서 발린 (V) 잔기를 갖는 FcγRIIIa 의 아형 (또한, CD16a 로서 공지됨; Uni Prot No. P08637, NCBI 기탁 번호 NP_000560, 인간 단백질) 을 지칭한다. FcγRIIIa(V158) 에 의한 IgG 결합은 FcγRIIIa(F158) 에 의한 결합보다 더 우수한 것으로 밝혀졌다 (17).
"특이적으로 결합된" 이란, 그 결합이 Fc 수용체에 대해 선택적이고 원하지 않거나 또는 비특이적인 상호작용으로부터 구별될 수 있다. 항체의 Fc 수용체와의 결합능은 효소면역측정법 (ELISA) 또는 당업자에게 친숙한 기타 기법, 예를 들어 본원에 기재된 바와 같은 표면 플라즈몬 공명 (SPR) 을 통해 측정될 수 있다.
"결합 친화도"는, 분자 (예, 수용체) 의 단일 결합 부위 및 그의 결합 파트너 (예, 리간드) 간 비(非)공유 상호작용의 전체 합계의 강도를 지시한다. 달리 지시되지 않는 한, 본 발명에서 사용되는 바와 같이, "결합 친화도"는 결합쌍 멤버들 (예, 수용체와 그의 리간드) 간의 1:1 상호작용을 반영하는 고유 결합 친화도를 지칭한다. 분자 X 의 그의 파트너 Y 에 대한 친화도는 일반적으로 해라 상수 (KD) 로 나타낼 수 있으며, 이는 해리 및 연합 속도 상수 (각각, koff 및 kon) 의 비율이다. 따라서, 등가의 친화도는 상기 속도 상수들의 비가 동일하는 채로 남아있는 한 상이한 속도 상수를 포함할 수 있다. 친화도는 본원에서 기술된 것을 포함해 당업계에 공지된 익히 확립되어 있는 방법에 의해 측정될 수 있다. 친화도 측정을 위한 특정한 방법에는 표면 플라즈몬 공명 (SPR) 이 있다.
항체 모집단과 연계되어 사용되는 경우 용어 "정제된" 이란, 항체 모집단이 필수적으로 관련없는 비(非)항체 단백질이 부재한 것을 의미한다. 항체의 정제를 위한 다양한 방법은 고성능 액체 크로마토그래피, 이온 교환 크로마토그래피, 겔 전기영동, 친화도 크로마토그래피, 크기 배제 크로마토그래피 등을 비롯해 당업계에 공지되어 있다. "친화도 정제된" 항체 모집단이란, 항체들이, 그러나 관련없지 않은 비(非)항체 단백질들이 특이적으로 결합하는 친화도 기질, 예를 들면 단백질 A 또는 단백질 G 를 포함하는 친화도 기질을 이용해 정제된 항체 모집단을 지칭하다.
본원에서 이용된 바 용어 "버퍼 용액" 은 규정된 pH 값을 가진 용액, 전형적으로는 용액의 pH 를 안정화하는 버퍼제를 포함하는 용액을 지칭한다. 버퍼제는 당업계에 익히 공지되어 있으며, 예를 들어 시트레이트 염, 아세테이트 염, 히스티딘 염, 숙시네이트 염, 말레이트 염, 포스페이트 염, 락테이트 염 또는 트리스(히드록시메틸)아미노-메탄 (Tris) 이 포함된다.
본원에서 사용된 바 "대다수"란, 전체 중, 50% 초과, 바람직하게 60% 초과, 가장 바람직하게 70% 초과를 의미한다.
도 1. 인간 IgG1 Fc 도메인의 Asn297 에 부착된 N-링크된 올리고당. 볼드체의 당은 펜타 5당류 중심을 정의하고, 기타 당 잔기의 첨가물은 변동적이다. GlcNAc: N-아세틸글루코사민; Fuc: 푸코오스; Man: 만노오스; Gal: 갈락토오스; NeuAc: N-아세틸뉴라민산.
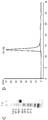
도 2. 가용성 인간 FcγRIIIa(V158) 의 정제. A) 고정화 금속 킬레이트 크로마토그래피 (IMAC) 의 크로마토그램. 실선: A280nm; 점선: 구배. B) 크기 배제 크로마토그래피 (SEC) 의 크로마토그램. 실선: A280nm. C) SDS PAGE, 쿠사미 염색. 레인 1: 분자량 마커 [kDa]; 레인 2: 감소된 FcγRIIIa(V158). D) 분석적 SEC 크로마토그램 (A280nm). 50 ㎍ 샘플을 주입했다.
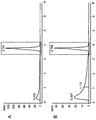
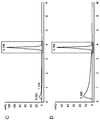
도 3. 분석적 FcγRIIIa(V158) 크로마토그래피. 10 ㎍ 의 A) 당조작된 IgG "A"; B) 야생형 IgG "A"; C) 당조작된 IgG "B"; D) 야생형 IgG "B" 에 대한 크로마토그램 (A280nm). 고함량의 비푸코실화 글리칸을 갖는 항체 분획에 해당하는 피크 ("결합 피크") 는 검정색 사각형으로 표시한다. "결합 피크"의 면적은 하기와 같다: A) 전체 피크 면적의 66% (MALDI TOF MS 로써 측정된 바, 48% 비푸코실화); B) 전체 피크 면적의 26% (MALDI TOF MS 로써 측정된 바, 10% 비푸코실화); C) 전체 피크 면적의 75% (MALDI TOF MS 로써 측정된 바, 75% 비푸코실화); D) 전체 피크 면적의 31% (MALDI TOF MS 로써 측정된 바 9% 비푸코실화).
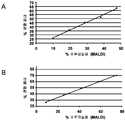
도 4. 분석적 FcγRIIIa(V158) 크로마토그래피의 평가. MALDI TOF MS 로써 측정된 바, 비푸코실화의 백분율의 함수로, 전체 피크 면적의 FcγRIIIa(V158) 의 크로마토그래피 컬럼으로부터 "결합 피크"의 면적의 백분율. A) 당조작 및 야생형 IgG "A" 의 혼합물 (0 - 100% 당조작된 IgG). B) 당조작 및 야생형 IgG "B" 의 혼합물 (0 ~ 100% 당조작된 IgG).
도 5. 세포 배양 상청액으로부터 정제된 항체 (당조작된 IgG "C") 의 푸코실화 정도를 분석하기 위한 두가지 상이한 방법들로서, 단백질 A 크로마토그래피 후 MALDI TOF MS 와 단백질 A 크로마토그래피 후 FcγRIIIa(V158) 크로마토그래피의 비교. MALDI TOF MS 에 의해 측정된 바, 비푸코실화 백분율의 함수로서 전체 피크 면적의 FcγRIIIa(V158) 크로마토그래피 컬럼으로부터 "결합 피크"의 면적의 백분율.
도 6. 제조용 FcγRIIIa(V158) 크로마토그래피. 당조작된 IgG "A" 의 크로마토그램. IgG "A" 는 3 피크에서 용리: 피크 1 은 컬럼의 통과액, 피크 2 및 3 은 두 pH 단계로 용리. 피크 1, 2 및 3 에 대한 풀을 나타낸다. 실선: A280nm; 점선: 구배; 대쉬 선: pH-값.
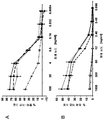
도 7. 제조용 FcγRIIIa(V158) 크로마토그래피로부터 수집된 항체 분획들의 생물학적 활성. ADCC 검정을, 당조작된 IgG "A" (A) 및 IgG "B" (B) 를 위한 출발 물질 (FcγRIIIa(V158) 컬럼 상에 로딩된 바와 같은 항체 풀) 뿐 아니라, 3 가지 용리된 피크에 대해 실시하였다. 검정색 사각형: 출발 물질; 백색 다이아몬드: 피크 1; 검정색 삼각형: 피크 2; 검정색 동그라미: 피크 3; 백색 사각형 (B 에만 나타냄): 야생형 IgG "B" (당조작된 것은 아님).
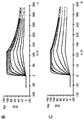
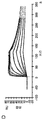
도 8. 표면 플라즈몬 공명에 의해 분석된, 제조용 FcγRIIIa(V158) 크로마토그래피로부터 수집된 항체 분획들과의 가용성 인간 FcγRIIIa(V158) 의 상호작용. A) IgG "A", 피크 1 (정상 상태에서 분석); B) IgG "B", 피크 2; C) IgG "B", 피크 3; D) FcγRIIIa(V158) 컬럼 상에 로딩된 바와 같은 IgG "B" 의 항체 풀에 대한 센서그램 및 적합 (fitting). E) (정상 상태에서 분석된) 당조작 없는, 야생형 IgG "B" 의 센서그램.
실시예
하기는 본 발명의 방법 실시예이다. 상기에 제공된 일반적인 설명을 고려할 때 다양한 다른 구현예가 실시될 수 있음은 자명하다.
실시예 1
가용성 인간 FcγRIIIa(V158)K
6
H
6
의 제조 및 정제
C-말단 (리신)6 및 (히스티딘)6 태그 (SEQ ID NO 1 및 2 참조) 를 갖는 가용성 인간 FcγRIIIa (V158) 를, 칼슘 포스페이트 트랜스펙션을 이용해 포유동물 발현 벡터로 HEK293-EBNA 세포를 트랜스펙션함으로써 제조하였다.
트랜스펙션을 위해, 10% (v/v) FCS 로 보충된 DMEM 배양 배지를 이용해 T-플라스크에서 부착 단층 배양물로서 세포를 성장시키고, 상기 세포를 50 내지 80% 포화도 (confluent) 가 될 때 트랜스펙션하였다. T150 플라스크의 트랜스펙션에 있어서, 1500 만 세포를 FCS (최종 10% v/v) 로 보충된 25 ml DMEM 배양 배지에서 트랜스펙션하기 24 시간 전에 시딩하고, 세포를 습한 5% CO2 분위기 하, 하룻밤 동안 37 ℃ 인큐베이터에 배치하였다. 트랜스펙션될 각 T150 플라스크에 있어서, DNA, CaCl2 및 물의 용액을, 최종 부피 469 ㎕ 로의 물 중 94 ㎍ 전체 플라스미드 벡터 DNA 및 469 ㎕ 의 1 M CaCl2 용액을 혼합함으로써 제조하였다. 상기 용액에, 938 ㎕ 의 50 mM HEPES, 280 mM NaCl, 1.5 mM Na2HPO4 용액, pH 7.05 을 첨가하고, 10 초 동안 즉시 혼합한 다음 실온에서 20 초 동안 정치한다. 현탁액을 2 % (v/v) FCS 로 보충된 10 ml 의 DMEM 으로 희석하고, 기존의 배지 대신 T150 플라스크에 첨가했다. 이어서, 추가 13 ml 의 트랜스펙션 배지를 첨가하였다. 세포를 37 ℃, 5 % CO2 에서 약 17 내지 20 시간 동안 인큐베이션한 다음, 배지를 25 ml DMEM, 10% FCS 로 대체하였다. 조건화 배양 배지를 15 분 동안 210 x g 에서 원심분리로써 약 7 일 배지-교환후 수집하고, 용액을 멸균 여과하고 (0.22 ㎛ 필터), 0.01 % (w/v) 의 최종 농도로 나트륨 아지드를 첨가하고, 4 ℃ 에서 유지하였다.
고정화 금속 킬레이트 크로마토그래피 (IMAC) 후 크기 배제 크로마토그래피에 의해, 분비된 단백질을 정제했다 (도 2A, B).
금속 킬레이트 크로마토그래피를 위해, 상청액을 버퍼 A (20 mM Na2HPO4 0.5M NaCl pH 7.4) 로 평형화된 NiNTA Superflow 카트리지 (컬럼 부피: 5 ml; Qiagen, Germany) 상에 4 ml/분으로 로딩하였다. 결합되지 않은 단백질은 적어도 10 컬럼 부피 버퍼 A 로 세정함으로써 제거하였다. FcγRIIIa(V158) 를, 버퍼 B (20 mM Na2HPO4, 0.5 M NaCl, 0.5 M 이미다졸, pH 7.4) 로의 구배로 용리하였다. 상기 구배는 하기 3 단계로 이루어진다: 1) 8 컬럼 부피 상 0 내지 45% 버퍼 B, 2) 2 컬럼 부피 상 45 내지 100% 버퍼 B, 및 3) 2 컬럼 상 100% 버퍼 B. 제 2 용리 피크를 풀링하고, 2 mM MOPS, 150 mM NaCl, 0.02% (w/v) NaN3, pH 7.4 로 평형화된 크기 배제 크로마토그래피 컬럼 (HiLoad 16/60 Superdex 75; GE Healthcare, Sweden) 상에 로딩하기 전에 원심분리 필터 단위 (Amicon Ultra MWCO 10 kD; Millipore, USA) 를 이용해 농축시켰다.
정제된 단백질 샘플의 단백질 농도를, 아미노산 서열을 기준으로 산출된 몰 흡광 계수를 이용해, 280 nm 에서 흡광도 (OD) 를 측정함으로써 결정하였다. 재조합 인간 FcγRIIIa(V158) 의 순도 및 분자량을 환원제 (5 mM 1,4-디티오트레이톨) 의 존재 및 부재 하 SDS PAGE 및 쿠마시 (InstantBlue™, Expedeon) 염색으로써 분석하였다. NuPAGE® Pre-Cast 겔 시스템 (4-12% Bis-Tris, Invitrogen, USA) 을, 제작자 지침에 따라 이용했다 (도 2C). 단백질의 응집물 함량 (50 ㎍ 샘플) 을 Superdex 75 10/300GL 분석적 크기 배제 컬럼 (GE Healthcare, Sweden) 을 이용해 2 mM MOPS, 150 mM NaCl, 0.02% (w/v) NaN3, pH 7.3 작동 버퍼 중, 25℃ 에서 분석하였다 (도 2D).
실시예 2
항체 푸코실화의 분석
인간 IgG 로부터 Fc 단편의 제조. 항체를, 1 mg 당 0.42 U 플라스민 함유 50 mM Tris pH 8.0, 150 mM NaCl (Roche, Switzerland) 에서 72 시간 동안 25℃ 에서 인큐베이션하였다. 절단된 Fc 단편들을 50 mM Tris pH 8.0, 100 mM 글리신, 150 mM NaCl 로 세정한 단백질 A 비즈 (GE Healthcare) 를 이용해 Fab-단편으로부터 분리했다. Fc 단편을 50 mM Tris pH 3.0, 100 mM 글리신, 150 mM NaCl 로 용리하였다. 용리액을, 1:40 v/v 2 M Tris pH 8.0 을 첨가함으로써 중화하고, 크기 배제 크로마토그래피 컬럼 (Superdex S200 10/300 GL, GE Healthcare) 상에 로딩했다. 샘플을 농축하고, 버퍼를 20 mM Tris pH 8 (Amicon, Millipore) 로 교환했다.
인간 Fc 단편으로부터 N-링크된 올리고당의 방출 상이한 효소를 인간 Fc 단편으로부터 N-링크된 글리칸을 가수분해하는데 사용하였다. N-링크된 올리고당을, 0.005 U 재조합 PNGase F (QAbio, USA) 으로의 인큐베이션에 의해 1 mg 의 Fc 단편으로부터 절단하였다. 비(非)태깅된 Endo S (Genovis, Sweden) 및 Endo H (QAbio, USA) 을 이용해 Fc 단편으로부터 탄수화물을 방출시키기 위해, 샘플을, 1:20 의 몰비로 조합된 Endo S 와 0.1 U/mg Endo H 과 함께 인큐베이션하였다. 모든 반응물을 20 mM Tris pH 8.0 중 37℃ 에서 16 시간 동안 인큐베이션하였다.
전체 인간 IgG 로부터 N-링크된 올리고당의 방출. 비(非)태깅된 Endo S 및 Endo H 를 이용해 전체 인간 IgG 로부터 탄수화물을 방출하기 위해, 샘플을 20 mM Tris pH 8.0 (Amicon 5.000 MWCO, Millipore) 중 버퍼 교환하였고, 이를 Endo S 와 0.1 U/mg Endo H 의 1:7 몰비 조합물 중 37℃ 에서 16 시간 동안 인큐베이션하였다.
카르복시펩티다아제 B 처리 C-말단 리신에 의해 야기된 불균일성 (heterogeneity) 을 제거하기 위해, 샘플을 카르복시펩티다아제 B (Roche; 1 mg/ml) 와 추가 인큐베이션하였다. 따라서, 50 ㎍ 단백질 당 1 ㎕ 카르복시펩티다아제 B 를, 엔도글리코시다아제 반응에 첨가하고, 1 시간 동안 37℃ 에서 다시 인큐베이션하였다. 소화 (digestion) 후, 샘플을 단백질 A (POROS A 20, Applied Biosystems) 를 이용해 정제하고, 1:40 v/v 2 M Tris pH 8.0 로 중화했다.
MALDI-TOF 질량분광 분석. 인간 IgG 에 대한 중성 올리고당 프로파일을 Papac et al (18) 에 따라 양성 이온 모드로 질량 분광측정 (Autoflex, Bruker Daltonics GmbH) 으로써 분석했다 .
직접적인 투입에 의한 인간 Fc 단편으로부터 글리칸 구조의 ESI-MS 분석 (오프 라인 검출). 프로테아제 플라스민 및 카르복시펩티다아제 B 로 및 엔도글리코시다아제 Endo S 및 Endo H 로 처리된 20-50 ㎍ (90 ㎕ 이하) 의 항체를, 2% (v/v) 포름산, 40% (v/v) 아세토니트릴로 평형화한 Sephadex G25 자가-포장 ECO SR 컬럼 (5 x 250 mm) (KronLab) 상에 30 분 동안 0.5 ml/분의 유속으로 주입했다. 주입된 항체 샘플을, 1 ml/분의 유속으로 2% (v/v) 포름산, 40% (v/v) 아세토니트릴을 이용한 8 분의 등용매 용리를 적용해 탈염하였다. 탈염 단백질의 용리는 UV 로써 280 nm 에서 기록하고, 용리 샘플 (약 200-300 ㎕ 체적) 을 1.5 ml 반응 바이알에서 수집했다. 탈염 샘플 분취물을 수동적으로 금속-코팅된 유리 니들 (Proxeon Biosystems Nano ESI-needles, cat# ES387) 에 채우고, 질량 분광측정 장치의 나노스프레이 공급원에 삽입하고, Waters 사의 ESI-Q-TOF II 질량 분광측정기에 또는 Applied Biosystems 사의 Q-Star Elite 질량분광기에 분무했다. MS 스펙트럼을, 80℃ 의 공급원 온도를 이용한 양성 이온 모드에서 1000 ~ 2000 m/z 질량 범위에서 1000 V 의 모세관 전압, 30 V 의 콘 전압을 이용해 획득했다. 탈용매화 온도는 작동되지 않았다. MS 데이타를, 각 장치 소프트웨어에 의해 2-3 분 동안 획득했다. 엔도글리코시다아제 적용에 의해 끝이 잘린 (truncation) 글리칸 구조의 상이한 조합을 포함하는 다이머 Fc 단편 (즉, 양 펩티드 사슬이 오로지 N-아세틸글루코사민 잔기만을 보유하는 분자 (GlcNAc / GlcNAc), 펩티드 사슬 중 하나는 추가적으로 푸코오스 잔기를 보유하는 분자 (GlcNAc+Fuc / GlcNAc) 및 양 펩티드 사슬이 푸코오스 잔기를 보유하는 분자 (GlcNAc+Fuc / GlcNAc+Fuc)) 의 몰 질량을, 사내 개발 소프트웨어를 이용해 Fc 단편 종들의 각 m/z 패턴으로부터 결정하였다. 3 가지 상이한 잉여 글리코실화 다이머 Fc-단편의 상대비를, 별개의 글리코실화 변이체의 m/z 스펙트럼의 피크 면적 합계를 이용하는 동일한 사내 소프트웨어로 산출하였다.
LC/MS 에 의한 인간 Fc 단편으로부터 글리칸 구조의 ESI-MS 분석 (온 라인 검출). LC-MS 방법을 QTof II 질량 분광측정기와 연결된 Agilent Cap LC1100 (Waters) 에서 수행했다. 크로마토그래피 분리를 Phenomenex Jupiter C18 컬럼 (5 ㎛ 입자 크기, 300 A 세공 크기, 1 x 25 mm) 상에서 수행했다. 용리액 A 는 수중 0.5% (v/v) 포름산이고, 용리액 B 는 70% (v/v) 이소프로판올, 20% (v/v) 아세토니트릴, 9.5% (v/v) 물 및 0.5% (v/v) 포름산이었다. 유속은 40 ㎕/분이고, 분리는 최종 부피 10 ㎕ 에서 2 ㎍ 단백질을 이용해 75℃ 에서 수행했다.
실시예 3
분석적 FcγRIIIa 크로마토그래피
친화도 기질의 제조. 10 mg FcγRIIIa(V158) 를, 원심분리 필터 장치 (Amicon Ultra MWCO 10 kD; Millipore, USA) 를 이용해 0.1 M 나트륨 포스페이트, 0.05% (w/v) NaN3, pH 7 로 버퍼 교환하였고, 최종 부피 1.2 ml 로 농축했다. 단백질 농도는 280 nm 에서의 흡광도를 측정하는 UV 분광계로써 결정하고, 8 mg/ml 로 조정했다. 0.14 g 의 건조 비즈와 상응하는 440 ㎕ POROS AL 비즈 (Applied Biosystems, USA) 를 단백질 용액에 첨가했다. 후속해서, 0.01 M NaOH 중 1 M NaCNBH3 41.5 ㎕ 을 첨가하고, 현탁액을 실온에서 하룻밤 인큐베이션하였다. 상청액을 비즈의 원심분리로써 제거하고, 비(非)결합된 단백질을 UV 분광계로써 정량했다. 비즈를 500 ㎕ 1 M Tris, pH 7.4 및 23 ㎕ 1 M NaCNBH3 (0.01 M NaOH 중) 로 30 분 동안 실온에서 켄칭 (quenching) 했다. 비즈를 4 회 1 M NaCl 로 세정하고, 3 회 2 mM MOPS, 150 mM NaCl, 0.02% (w/v) NaN3, pH 7.3 로 세정했다. 마지막으로, 14 mg FcγRIIIa(V158) 을 POROS AL 비즈 g 당 커플링했다.
POROS AL 상 고정된 FcγRIIIa(V158) 를 이용하는 분석적 크로마토그래피. FcγRIIIa(V158) 를 갖는 POROS AL 비즈를, Agilent 1200 HPLC 시스템 (Agilent Technologies, USA) 상에 탑재된 2x20 mm Upchurch Scientific 컬럼 (컬럼 부피: 60 ㎕) 에 포장했다. 사용된 버퍼는 평형화 및 세정을 위한 10 mM Tris, 50 mM 글리신, 100 mM NaCl, pH 8 또는 용리를 위한 10 mM Tris, 50 mM 글리신, 100 mM NaCl, pH 3 이었다. 상기 시스템의 펌프 유속은 0.5 ml/분으로 설정했다. 0 시간에, 항체 제제 (10 ㎍ 의 단백질 A-정제된 항체) 를, 오토샘플러로써 주입하고 2 분간 세정한 다음, 4.33 분 동안 재평형화하기 전에 0.66 분 기간의 단계 구배로 용리했다. 총 주기 기간은 7 분이었다.
크로마토그램은 2 개의 피크를 보였다: 통과액 피크 및 용리 피크 (도 3). 양 피크의 면적은 적분으로써 측정하고, 총 면적에 대한 용리된 피크 ("결합 피크") 의 백분율을 기록했다.
고 처리량 분석 목적으로 상기 방법을 적용하고, 항체 제제 내 비푸코실화의 백분율을 정량화하기 위해, 샘플을 먼저 Agilent 1200 HPLC 시스템 상 단백질 A 를 이용하는 친화도 크로마토그래피를 통해 상청액으로부터 정제하고, 96-웰 플레이트에서 수집했다. 샘플을 10 mM Tris, 50 mM 글리신, 100 mM NaCl, pH 3 에 용리하고, 1:40 (v/v) 2 M Tris pH 8 첨가에 의해 중화시키고, FcγRIIIa(V158) 크로마토그래피 컬럼 상에 재주입하였다. 단백질 A 크로마토그래피 후 항체 농도는 공지되기 때문에, FcγRIIIa(V158) 크로마토그래피 컬럼 상 각 샘플 10 ㎍ 을 주입하도록 주입 체적을 조절했다.
야생형 및 당조작된 항체를 세정 버퍼에서 혼합해 상이한 비푸코실화 비율을 수득하고, 직접 FcγRIIIa(V158) 컬럼 상에서 크로마토그래피 분석했다. MALDI TOF MS 에 의해 측정된 비푸코실화 백분율 및 FcγRIIIa(V158) 크로마토그래피 컬럼 상 "결합 피크"의 백분율은 선형의 상관관계를 보인다 (도 4).
당조작된 IgG "C" 를 발현하는 상이한 세포 클론의 세포 배양 상청액을, 두 가지 상이한 방법을 통해 동시에 분석했다: 1) 단백질 A 크로마토그래피 후 MALDI TOF MS 및 2) 단백질 A 크로마토그래피와 후속의 FcγRIIIa(V158) 크로마토그래피. 상기의 고-처리량 분석을 위해, 100 ㎕ 의 상청액을 단백질 A 크로마토그래피 컬럼 상에 주입하고, 용리액을 1:40 (v/v) 2 M Tris pH 8 첨가로써 중화하고, 탄수화물의 MALDI TOF MS 분석을 위해 PNGase F 로 소화시키거나 또는 FcγRIIIa(V158) 크로마토그래피 컬럼 상 주입했다. 단백질 A 크로마토그래피와 FcγRIIIa(V158) 크로마토그래피의 조합의 장점은, 단백질 A 컬럼으로부터 용리된 샘플을 함유하는 96-웰 플레이트를 임의의 추가 버퍼 교환 또는 피펫팅 단계 없이 중화 후 직접 사용할 수 있다는 점이다. FcγRIIIa(V158) 컬럼 상 "결합 피크"의 면적 백분율을, 상이한 세포 클론에 의해 생성된 항체에 대해 MALDI TOF MS 에 의해 수득된 비푸코실화 백분율과 비교했다. 두 방법으로 유사한 랭킹이 얻어졌고, 본 발명의 방법이 가장 높은 비푸코실화 정도를 갖는 항체를 생성하는 클론의 동정을 가능하게 한다는 점을 보였다 (도 5).
이들 결과는 FcγRIIIa 크로마토그래피가 높은 처리율로 세포 배양 상청액을 스크리닝하는데 사용될 수 있으며, 비푸코실화 정도에 따라 생성된 항체들의 순위를 매길 수 있다는 점을 보인다.
실시예 4
제조용 FcγRIIIa 크로마토그래피
친화도 기질의 제조. 30 mg FcγRIIIa(V158) 를, NHS 활성화 Sepharose 4FF (GE Healthcare, Sweden) 에 커플링하였다. 간략하게, FcγRIIIa(V158) 를, 0.2 M NaHCO3, 0.5 M NaCl, pH 8.2 로 교환하고, 최종 부피 2 ml 로 농축하고, 4 시간 동안 실온에서, 1 mM 냉 HCl 로 이전에 세정했던 3 ml NHS 활성화 비즈와 함께 인큐베이션하였다. 상청액을 제거하고, 비즈를 추가로 2 시간 동안 실온에서 0.1 M Tris, pH 8.5 와 인큐베이션하였다. 이어서, 비즈를 중력 유동으로써 빈 Tricorn 5/150 컬럼 (GE Healthcare, Sweden) 으로 포장시킨 후, 1.2 ml/분으로 Aekta Explorer 10 (GE Healthcare, Sweden) 을 이용해 포장했다. 최종 컬럼 부피는 14 cm 의 컬럼 길이에서 2.7 ml 였다. 30 mg 인간 FcγRIIIa(V158) 를 고정시켰다.
NHS Sepharose 4 FF 상 고정된 FcγRIIIa(V158) 를 이용한 상이한 비푸코실화 정도를 갖는 항체의 제조용 분리. 크로마토그래피에 있어서, 컬럼을 10 컬럼 부피 20 mM Tris, 20 mM MOPS, 20 mM 나트륨 시트레이트, 100 mM NaCl, pH 8 로 평형화하고, 3 mg 의 정제된 항체 (단백질 A 친화도 크로마토그래피 및 크기 배제 크로마토그래피) 를 유속 0.1 ml/분에서 로딩했다. 컬럼을 20 mM Tris, 20 mM MOPS, 20 mM 나트륨 시트레이트, 100 mM NaCl, pH 8 로 5 컬럼 부피에 대해 세정하고, 상이한 항체 모집단을 pH 4.6, pH 4.2 및 pH 3 의 3 가지 pH 단계로 용리했다 (도 6). 원하는 pH 값을, 20 mM Tris, 20 mM MOPS, 20 mM 나트륨 시트레이트, 100 mM NaCl, pH 8 및 20 mM Tris, 20 mM MOPS, 20 mM 나트륨 시트레이트, 100 mM NaCl, pH 3 을 적절한 비율로 혼합하여 수득했다. 피크들을 수집하고 농축하고 정제를 위해 단백질 A HPLC 상에 주입하거나, 또는 단백질 A 비즈 (후속의 MALDI TOF MS 분석을 필요로 함) 로 배치식 (batch) 정제하였다. 항체를 후속해서 그의 탄수화물 조성, 그의 FcγRIIIa(V158) 와의 결합, 및 그의 ADCC 유도 능력에 대해 분석했다.
실시예 5
분리된 항체들의 분석
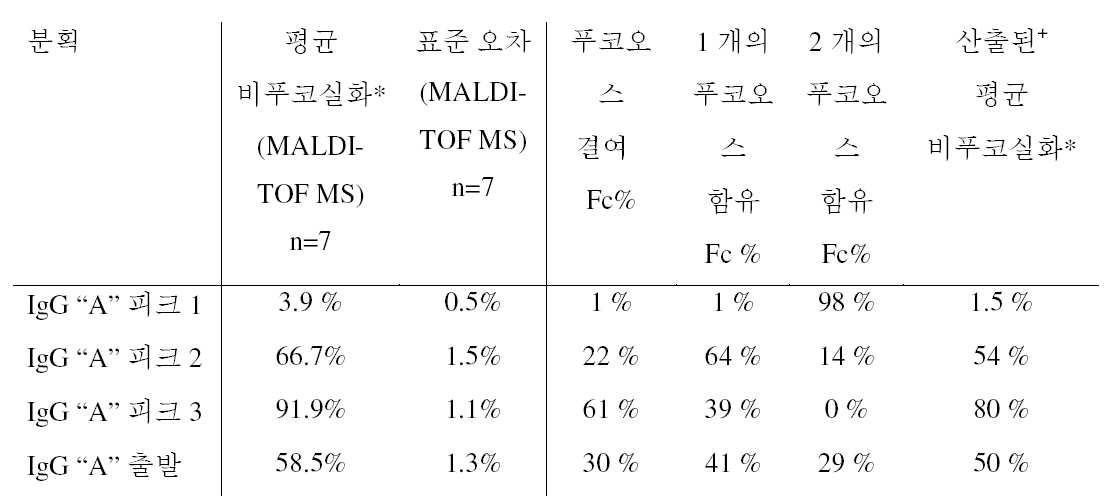
탄수화물 조성 분석. 올리고당의 MALDI TOF MS 분석을 위해, 올리고당을, PNGase F 및 Endo H 로 정제된 항체에서 절단해 냈다 (16). FcγRIIIa(V158) 크로마토그래피로, 상이한 함량의 비푸코실화 글리칸을 갖는 항체의 분획을 분리했다. 통과액에 해당하는 제 1 피크는 가장 적은 양의 비푸코실화 올리고당을 가졌고, 그 다음이 피크 2 및 3 이었다 (표 2 및 3 참조). 그러나, MALDI TOF MS 분석은 제제 내 비푸코실화 올리고당의 총량만을 나타낸다.
Fc 도메인 내 2 개의 항체 중쇄 상 푸코오스 잔기의 분포도를 측정하기 위해, 샘플을 Endo S 및 Endo H 를 이용한 조합 처리로 소화시켰다 (상기 및 PCT 공개공보 번호 WO 2011/039150 에 기술되어 있으며, 이는 본원에서 참조로서 그 전문이 혼입되어 있음).
IgG "A" 에 있어서, 정제된 항체를 플라스민, Endo H 및 Endo S 로 소화시켜, 오로지 올리고당 중심의 제 1 N-아세틸글루코사민 잔기 및 푸코실화 탄수화물의 경우 푸코오스 잔기를 보유하는 Fc 단편을 수득했다. 이들 Fc 단편을 ESI-MS 로써 분석하고 Fc 단편 당 푸코오스의 분포도를 측정했다 (표 1).
표 1. FcγRIIIa(V158) 크로마토그래피에 의해 3가지 분획으로 분리된 IgG "A" 의 항체 풀에 대한 비푸코실화 탄수화물의 함량. 비푸코실화 정도를 PNGase F 처리 후 MALDI TOF MS (7 회 실시 (run) 의 평균) 로써 포괄적으로 측정하거나, 또는 Fc 당 푸코오스 분포를 플라스민/Endo S/Endo H 소화 후 ESI-MS 로써 측정했다 (3 회 실시의 풀).
* 각 피크에서 용리된 모든 글리칸 중 푸코오스 잔기 결여 글리칸의 백분율.
+ MALDI TOF 와 ESI-MS 결과 비교를 위해 산출된 값. 상기 값은, 3 가지 모든 Fc 당형 (glycoform) 에 있어서 푸코오스 결여 글리칸의 백분율들을 더해 산출한다. 예를 들어, 피크 2 에서, 22/100 의 Fc 단편은 2 개의 비푸코실화 글리칸을 포함하고 (즉, 44/200 글리칸이 비푸코실화됨), 64/100 Fc 단편은 1 개의 비푸코실화 글리칸을 포함하고 (즉, 64/200 글리칸이 비푸코실화됨) 및 14/100 Fc 단편은 어떠한 비푸코실화 글리칸도 포함하지 않아 (즉, 0/200 글리칸이 비푸코실화됨), 총 44+64+0 = 108/200 = 54% 의, 피크 2 에서 용리된 비푸코실화 글리칸.
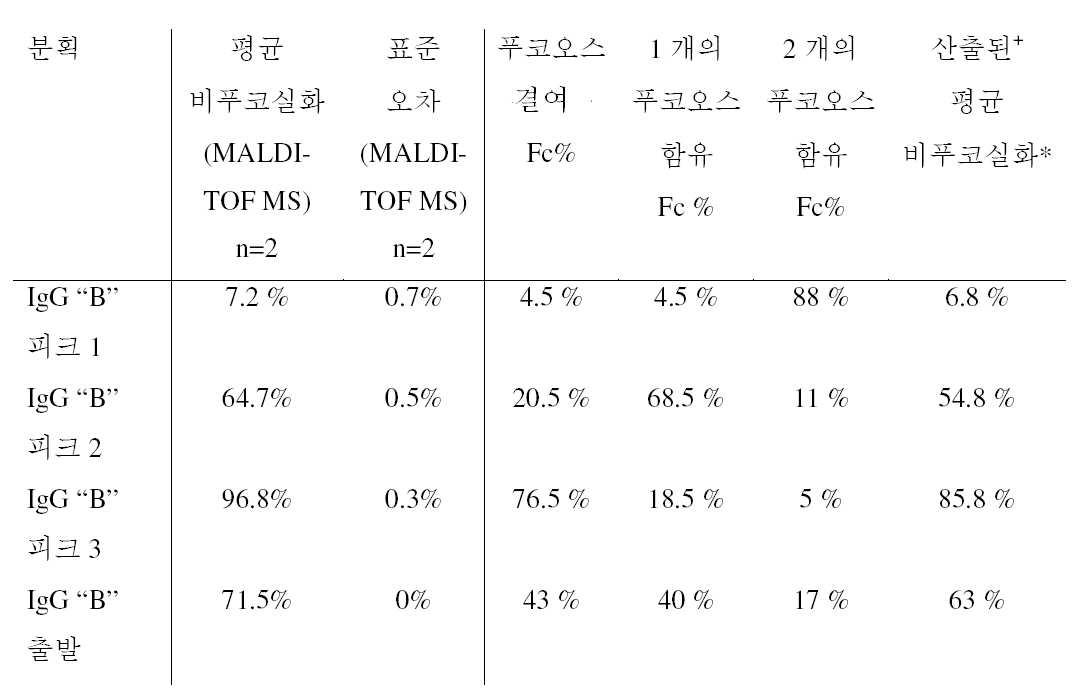
IgG "B" 에 있어서, 정제된 항체를 Endo H (QA Bio) 및 Endo S (Genovis) 로 소화시켜, 푸코오스를 갖거나 그렇지 않은 올리고당 중심의 제 1 N-아세틸글리코사민 잔기로 이루어진 글리칸을 갖는 전체 IgG 를 수득하였다. 이들 샘플을 ESI-MS 로써 분석하고, 항체 당 푸코오스의 분포를 측정하였다 (표 2).
표 2. FcγRIIIa(V158) 크로마토그래피에 의해 3가지 분획으로 분리된 IgG "B" 의 항체 풀에 대한 비푸코실화 탄수화물의 함량. 비푸코실화 정도를 PNGase F 처리 후 MALDI TOF MS 로써 포괄적으로 측정하거나 (2 회 실시의 평균), 또는 IgG 당 푸코오스 분포를 Endo S/Endo H 소화 후 ESI-MS 로써 측정했다 (2 회 실시의 평균).
* 각 피크에서 용리된 모든 글리칸 중 푸코오스 잔기 결여 글리칸의 백분율.
+ MALDI TOF 와 ESI-MS 결과 비교를 위해 산출된 값. 상기 값은, 3 가지 모든 Fc 당형에 있어서 푸코오스 결여 글리칸의 백분율들을 더해 산출한다. 예를 들어, 피크 2 에서, 20.5/100 의 Fc 단편은 2 개의 비푸코실화 글리칸을 포함하고 (즉, 41/200 글리칸이 비푸코실화됨), 68.5/100 Fc 단편은 1 개의 비푸코실화 글리칸을 포함하고 (즉, 68.5/200 글리칸이 비푸코실화됨) 및 11/100 Fc 단편은 어떠한 비푸코실화 글리칸도 포함하지 않아 (즉, 0/200 글리칸이 비푸코실화됨), 총 41+68.5+0 = 109.5/200 = 54.8% 의, 피크 2 에서 용리된 비푸코실화 글리칸.
IgG "A" 및 "B" 양자 모두에 있어서, 피크 1 은 Fc 도메인 내 양자 모두의 중쇄 상에 푸코실화 당을 갖는 항체 (즉, 완전 푸코실화 항체) 를 대부분 포함하는 반면, 피크 2 는 1 개의 푸코실화 및 1 개의 비푸코실화 탄수화물을 갖는 항체를 대부분 포함하고, 피크 3 의 모집단은 대다수 완전 비푸코실화 항체를 포함한다. 상기 산출값 (상기 표 1 및 2 에서 마지막 줄 참조) 이 일반적으로 MALDI TOF MS 결과치보다 적기 때문에, 완전 비푸코실화된 항체의 백분율은 ESI-MS 방법에 의해약간 적게 추산된 것으로 보인다.
항체 의존성 세포매개 세포독성 (ADCC). 상이한 분획들을 그의 ADCC 유도능에 대해 시험했다. Raji (IgG "A" ADCC 검정) 또는 A549 (IgG "B" ADCC 검정) 세포를 수확하고 (트립신/EDTA 을 갖는 부착 세포), 세정하고 30 분 동안 37℃ 에서 칼세인 (Invitrogen) 으로 라벨링했다. 30 분 후, 세포를 AIM V 배지로 3 회 세정하고, AIM V 배지 중 재현탁했다. 이들을 둥근 바닥 96 웰 플레이트에 30,000 세포/웰의 농도로 플레이팅했다. 각 항체 희석물을 첨가하고, 인간 효과기 세포 (NK92 1708 클론 LC3 E11, FcγRIIIa(V158) 로 트랜스펙션된 NK92 세포임) 와의 접촉 전 10 분 동안 인큐베이션하였다. 효과기 및 표적 세포를 3:1 의 비율로 4 시간 동안 37℃ 에서 공동-인큐베이션하였다. 락테이트 데히드로게나아제 (LDH) 방출을 LDH 세포독성 검출 키트 (Roche Applied Science, cat. no. 11 644 793 001) 를 이용해 측정했다. 칼세인 체류는 보레이트 버퍼 (5 mM 보레이트, 0.1% (v/v) Triton X-100) 로 남은 세포를 분해한 후 칼세인 형광 측정으로써 확인했다. 항체-의존 사멸의 산출을 위해, 자발적 방출 (오로지 항체가 없는 표적 및 효과기 세포) 은 0% 사멸로 설정하고, 최대 방출 (표적 세포 및 2% (v/v) Triton X-100) 를 100% 사멸로 설정했다.
오직 제 1 피크 (양 중쇄 상 푸코실화 탄수화물을 갖는 항체 포함) 는 야생형 IgG 와 필적하는 감소된 ADCC 유도능을 지녔다 (도 7). 피크 2 및 3 모두는 비슷한 ADCC 유도능을 지니는데, 이는 항체 당 단지 1 개의 비푸코실화 글리칸이면 IgG 에 우수한 ADCC 능력을 부여하기에 충분하다는 점을 나타낸다.
표면 플라즈몬 공명에 의한 FcγRIIIa 결합. 표면 플라즈몬 공명을 25℃ 에서 측정했다. 인간 항원 "B" 를 제작자 지침 (GE Healthcare, Sweden) 에 따라 CM5 칩 상 아민 커플링에 의해 고정시켰다. IgG 분획을 90 초 동안 100 nM 에서 10 ㎕/분으로 포획했다. 인간 FcγRIIIa(V158) 을 1.95-500 nM 의 농도 범위에서 유속 50 ㎕/분으로, 120 초 동안 유동 세포를 통과시켰다. 해리를 200 초 동안 모니터링했다. 표면을 다음 주입 전 60 초 동안 2 회의 10 mM 글리신, pH 2 주입으로 재생시켰다. 벌크 굴절률 차를, 기준 유동세포 상에서 수득된 응답을 차감시켜 정정하였다. 연합 속도 (kon) 및 해리 속도 (koff) 는 RI=0 및 Rmax=local 인 단순한 일대일 랭뮤어 (Langmuir) 결합 모델 (BIACORE® T100 Evaluation Software version 1.1.1) 을 사용하여 연합 및 해리 센서그램을 동시에 적합시킴으로써 산출했다. 평형 해리 상수 (KD) 는 koff/kon 비로서 산출한다.
표면 플라즈몬 공명에 의해 수득된 결과는 ADCC 검정의 결과와 부합했다 (표 3 및 도 8). 제 1 피크뿐 아니라 야생형 IgG "B" 는 매우 신속한 연합 (on) 및 해리 (off) 속도로 약 50 nM 의 KD 를 갖는 반면, 피크 2 및 3 와 당조작된 IgG "B" 는 FcγRIIIa(V158) 의 결합에 있어서 약 3 nM 의 KD 를 지니고, 해리 속도가 훨씬 더 느렸다. 피크 3 의 IgG 가 FcγRIIIa(V158) 에 대한 가장 높은 친화도를 지녔다.
표 3. FcγRIIIa(V158) 와 IgG "B" 사이의 친화도. 25℃ 에서 표면 플라즈몬 공명에 의해 수득된 KD. 출발 물질 및 FcγRIIIa(V158) 크로마토그래피로써 분리된 3 가지 피크의 IgG "B" 의 항체 풀을 고정화된 항원 상에 포획하고, FcγRIIIa (V158) 를 분해물로서 이용했다. 적합: 동역학적 (kinetic) (1:1 결합 RI=0, Rmax=local) 또는 정상 상태 (steady state).
종합해보면, 상기 실시예들은 FcγRIIIa(V158) 크로마토그래피가 Fc 도메인 내 비푸코실화 탄수화물의 함량에 따라 항체를 분리 가능하게한다는 점을 나타낸다. 상기 방법은 (단백질 A 크로마토그래피와 조합하여) 고-처리율로 상청액을 스크리닝하거나, 비푸코실화 정도가 높은 항체를 생성하는 클론을 동정하거나 또는 추가 특성평가를 위한 푸코오스 함량에 따른 IgG 의 분획을 분리하는데 적용될 수 있다. FcγRIIIa(V158) 크로마토그래피로 분리된 항체 모집단의 분석은, Fc 도메인 내 대부분 1 또는 2 개의 비푸코실화 탄수화물을 갖는 IgG 가, ADCC 측면에서 동일하게 거동하므로, 증강된 효과기 기능을 달성하기 위해서 100% 비푸코실화 항체 모집단이 필요한 것은 아니라는 점을 처음으로 밝혔다.
참고 문헌
1. Wright A, Morrison SL (1997) Effect of glycosylation on antibody function: implications for genetic engineering. Trends Biotechnol. 15(1):26-32
2. Krapp S et al (2003) Structural analysis of human IgG-Fc glycoforms reveals a correlation between glycosylation and structural integrity. J Mol Biol. 325(5):979-89
3. Raju TS (2008) Terminal sugars of Fc glycans influence antibody effector functions of IgGs. Curr Opin Immunol. 20(4):471-8
4. Jefferis R (2009) Recombinant antibody therapeutics: the impact of glycosylation on mechanisms of action. Trends Pharmacol Sci. 30(7):356-62
5. Hodoniczky J, Zheng YZ, James DC (2005) Control of recombinant monoclonal antibody effector functions by Fc N-glycan remodeling in vitro. Biotechnol Prog. 21(6):1644-52
6. Malhotra R et al (1995) Glycosylation changes of IgG associated with rheumatoid arthritis can activate complement via the mannose-binding protein. Nat Med. 3:237-43
7. Shields RL et al (2002) Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human FcγRIII and antibody-dependent cellular toxicity. J Biol Chem. 277(30):26733-40
8. Umana P et al (1999) Engineered glycoforms of an antineuroblastoma IgG1 with optimized antibody-dependent cellular cytotoxic activity. Nat Biotechnol. 17(2):176-80
9. Ferrara C et al (2006) Modulation of therapeutic antibody effector functions by glycosylation engineering: influence of Golgi enzyme localization domain and co-expression of heterologous β(1, 4)-N-acetylglucosaminyltransferase III and Golgi α-mannosidase II. Biotechnol Bioeng. 93(5):851-61
10. Kanda Y et al (2006) Comparison of biological activity among non-fucosylated therapeutic IgG1 antibodies with three different N-linked Fc oligosaccharides: the high-mannose, hybrid, and complex types. Glycobiology. 17(1):104-18
11. Deisenhofer J et al (1978) Crystallization, crystal structure analysis and atomic model of the complex formed by a human Fc fragment and fragment B of protein A from Staphylococcus aureus. Hoppe Seylers Z Physiol Chem. 359(8):975-85
12. Groneborn AM and Clore GM (1993) Identification of the contact surface of a streptococcal protein G domain complexed with a human Fc fragment. J Mol Biol. 233(3):331-5
13. Graille M et al (2001) Complex between Peptostreptococcus magnus protein L and a human antibody reveals structural convergence in the interaction modes of Fab binding proteins. Structure. 9(8):679-87
14. Drake P et al (2011) A lectin affinity workflow targeting glycosite-specific, cancer-related carbohydrate structures in trypsin-digested human plasma. Anal Biochem. 408:71-85.
15. Cho W et al (2008) Use of glycan targeting antibodies to identify cancer-associated glycoproteins in plasma of breast cancer patients. Anal Chem. 80:5286-5292.
16. Schuster M et al (2005) Improved effector functions of a therapeutic monoclonal Lewis Y-specific antibody by glycoform engineering. Cancer Res. 65(17):7934-41.
17. Koene HR et al (1997) FcγRIIIa-158V/F polymorphism influences the binding of IgG by natural killer cell FcγRIIIa, independently of the FcγRIIIa-48L/R/H phenotype. Blood. 90:1109-1114.
18. Papac DI et al (1996) Analysis of acidic oligosaccharides and glycopeptides by matrix assissted laser desorption/ionization time-of-flight mass spectrometry. Anal Chem. 68:3215-3223.
* * *
이해의 명확성을 위해 예시 및 실시예로써 전술의 본 발명을 상세히 기술하였으나, 그 기술 및 실시예를 본 발명의 영역을 제한하는 것으로서 해석되어서는 안된다. 본원에서 인용된 모든 특허 및 과학적 문헌의 개시물은 그 전문을 보원에서 참조로써 명확히 혼입하였다.
SEQUENCE LISTING
<110> Roche Glycart AG
<120> Separation method for fucosylated antibodies
<130> 30672
<150> EP 11185798.3
<151> 2011-10-19
<160> 2
<170> PatentIn version 3.5
<210> 1
<211> 222
<212> PRT
<213> Artificial Sequence
<220>
<223> soluble FcgRIIIa(V158)-(Lys)6-(His)6 fusion protein
<400> 1
Met Trp Gln Leu Leu Leu Pro Thr Ala Leu Leu Leu Leu Val Ser Ala
1 5 10 15
Gly Met Arg Thr Glu Asp Leu Pro Lys Ala Val Val Phe Leu Glu Pro
20 25 30
Gln Trp Tyr Arg Val Leu Glu Lys Asp Ser Val Thr Leu Lys Cys Gln
35 40 45
Gly Ala Tyr Ser Pro Glu Asp Asn Ser Thr Gln Trp Phe His Asn Glu
50 55 60
Ser Leu Ile Ser Ser Gln Ala Ser Ser Tyr Phe Ile Asp Ala Ala Thr
65 70 75 80
Val Asp Asp Ser Gly Glu Tyr Arg Cys Gln Thr Asn Leu Ser Thr Leu
85 90 95
Ser Asp Pro Val Gln Leu Glu Val His Ile Gly Trp Leu Leu Leu Gln
100 105 110
Ala Pro Arg Trp Val Phe Lys Glu Glu Asp Pro Ile His Leu Arg Cys
115 120 125
His Ser Trp Lys Asn Thr Ala Leu His Lys Val Thr Tyr Leu Gln Asn
130 135 140
Gly Lys Gly Arg Lys Tyr Phe His His Asn Ser Asp Phe Tyr Ile Pro
145 150 155 160
Lys Ala Thr Leu Lys Asp Ser Gly Ser Tyr Phe Cys Arg Gly Leu Val
165 170 175
Gly Ser Lys Asn Val Ser Ser Glu Thr Val Asn Ile Thr Ile Thr Gln
180 185 190
Gly Leu Ala Val Ser Thr Ile Ser Ser Phe Phe Pro Pro Gly Tyr Gln
195 200 205
Gly Lys Lys Lys Lys Lys Lys Gly His His His His His His
210 215 220
<210> 2
<211> 669
<212> DNA
<213> Artificial Sequence
<220>
<223> soluble FcgRIIIa(V158)-(Lys)6-(His)6 fusion protein, DNA
<400> 2
atgtggcagc tgctcctccc aactgctctg ctacttctag tttcagctgg catgcggact 60
gaagatctcc caaaggctgt ggtgttcctg gagcctcaat ggtacagggt gctcgagaag 120
gacagtgtga ctctgaagtg ccagggagcc tactcccctg aggacaattc cacacagtgg 180
tttcacaatg agagcctcat ctcaagccag gcctcgagct acttcattga cgctgccaca 240
gtcgacgaca gtggagagta caggtgccag acaaacctct ccaccctcag tgacccggtg 300
cagctagaag tccatatcgg ctggctgttg ctccaggccc ctcggtgggt gttcaaggag 360
gaagacccta ttcacctgag gtgtcacagc tggaagaaca ctgctctgca taaggtcaca 420
tatttacaga atggcaaagg caggaagtat tttcatcata attctgactt ctacattcca 480
aaagccacac tcaaagacag cggctcctac ttctgcaggg ggcttgttgg gagtaaaaat 540
gtgtcttcag agactgtgaa catcaccatc actcaaggtt tggcagtgtc aaccatctca 600
tcattctttc cacctgggta ccaaggcaaa aagaaaaaga aaaagggcca ccaccatcac 660
catcactga 669