SALMONELLA ENTERICA APRESENTANDO N-GLICANO DE C.JEJUNI OU DERIVADOS DO MESMO, SEU USO, MÉTODO DE PRODUÇÃO E COMPOSIÇÃO FARMACÊUTICA, ALIMENTO OU RAÇÃO, ADITIVO ALIMENTAR OU DE RAÇÃO COMPREENDENDO A MESMA
CAMPO DA INVENÇÃO
[001] A presente invenção refere-se à Salmonella enterica compreendendo pelo menos um operon pgl de Campylobacter jejuni ou um derivado funcional do mesmo e apresentando pelo menos um N-glicano de Campylobacter jejuni ou um derivado de N-glicano do mesmo em sua superfície celular. Além disso, a invenção está direcionada a usos médicos, composições farmacêuticas, aditivos alimentares e de rações , assim como a métodos para tratar e/ou prevenir infecções por Campylobacter, em particular aquelas causadas por C. jejuni, C. lari, C. coli, C. upsaliensis, e C. fetus, e opcionalmente infecções por Salmonella e métodos para produzir estas cepas de Salmonella.
ANTECEDENTES RELEVANTES DA INVENÇÃO
[002] Campylobacter jejuni (C. jejuni) é um patógeno transportado pelos alimentos que é a principal causa de gastroenterite aguda humana nos países desenvolvidos. Seus hospedeiros usuais são animais de criação, em particular aves e gado bovino. A infecção com C. jejuni também é associada a várias consequências de longo prazo, as mais graves sendo as doenças autoimunes denominadas síndrome de Miller-Fisher e síndrome de Guillain-Barré. Estas são provocadas por anticorpos do hospedeiro mamífero contra o mimetismo de estruturas dos gangliosídeos dos mamíferos na superfície do patógeno que então ataca também os gangliosídeos do hospedeiro. Este mimetismo molecular é uma das razões pelas quais atualmente não existem disponíveis vacinas eficientes contra C. jejuni porque ele exclui o uso de células atenuadas ou mortas de C. jejuni como vacinas.
[003] A Patente US 2007/065461 ensina uma vacina composta de pelo menos um polissacarídeo capsular (CPS) de C. jejuni opcionalmente ligado in vitro a uma proteína carregadora. Injeção deste conjugado em camundongos e macacos protegeu contra o posterior desafio intranasal com C. jejuni. A produção desta vacina requer isolamento e purificação do CPS assim como ligação química à proteína carregadora e etapas de purificação adicionais.
[004] Poly et al. (Infection and Immunity, 75:3425-3433, 2008) descrevem cepas de C. jejuni sem as estruturas que mimetizam os gangliosídeos que estão sendo atualmente testadas como candidatos à vacina.
[005] Inicialmente a glicosilação foi considerada especificamente um fenômeno eucariótico, mas posteriormente foi demonstrado que ela é comum nos domínios de Archaea e Eubacteria. As ligações O e N bacterianas são formadas com uma gama de açúcares maior do que aquelas observadas em glicoproteínas eucarióticas. A N-glicosilação glicosídica de proteínas em procariotos foi demonstrada pela primeira vez em C. jejuni. (Szymanski et al., Molecular Microbiology 32:10221030, 1999). O mecanismo de glicosilação da C. jejuni já foi caracterizado e foi até mesmo transferido com sucesso para E. coli, onde foi demonstrada N-glicosilação ativa de proteínas (Wacker et al., Science, 298:1790-1793, 2002). O loco genético de C. jejuni denominado pgl (para glicosilação de proteínas) está envolvido na glicosilação de diversas proteínas. Seu silenciamento mutacional resulta na perda de imunogenicidade de diversas proteínas.
[006] O pedido de patente US 2006/0165728 A1 identifica um heptassacarídeo específico e altamente imunogênico que é comum a pelo menos várias espécies de Campylobacter e numerosas cepas que são importantes como patógenos humanos e veterinários. O heptassacarídeo tem a fórmula (I) a seguir:
GalNAc-a1,4-GalNAc-a1,4-[Glc-ß-1,3]GalNAc-a1,4-Gal-NAc-a1,4- GalNAc-a1,3-Bac,
[007] em que Bac (também denominado bacilosamina) é 2,4-diacetamido-2,4,6-tridesóxi-D-glicopiranose, GalNAc é N-acetil-galactosamina e Glc é glicose. Esta porção glicana é um componente de diversas gliproteínas. Na C. jejuni o N-glicano é importante para a interação da C. jejuni com as células hospedeiras. Mutações no mecanismo de glicosilação levam a uma colonização diminuída nos tratos intestinais de camundongos. Além disso, composições farmacêuticas compreendendo seja (i) o referido heptassacarídeo ou um conjugado do mesmo ou (ii) um anticorpo voltado contra o referido heptassacarídeo são sugeridas para uso na vacinação de animais de criação, especificamente em aves.
[008] O gênero Salmonella é um membro da família Enterobacteriaceae. O gênero é composto de bacilos Gram-negativos que são anaeróbicos facultativos e flagelados (móveis). Eles possuem três antígenos principais, o antígeno "H" ou flagelar, o antígeno "O" ou somático (parte da porção LPS) e o antígeno "Vi" ou capsular (denominado "K" em outras Enterobacteriaceae). A Salmonellae também possui a endotoxina LPS característica das bactérias Gram-negativas. A LPS é composta de três domínios: A parte lipídio A, também conhecida com endotoxina, âncora de moléculas de LPS na membrana externa com suas cadeias de ácidos graxos. Ela é conectada através do núcleo interno consistindo em heptoses e KDO (ácido 3-desóxi-D-mano-octulosônico) com o núcleo externo contendo hexoses e N-acetil-hexoses. Ligada à última glicose do núcleo externo encontra-se a região do antígeno O polimérico. Esta região é composta de 16 a >100 repetições de uma estrutura de oligossacarídeo contendo quatro a seis monossacarídeos. A parte lipídio A endotóxica provoca febre e pode ativar fatores do complemento, de cinina e de coagulação.
[009] Durante algum tempo as cepas de Salmonella foram interessantes para produzir e apresentar imunógenos bacterianos. Por exemplo, os genes codificando as enzimas para a biossíntese do antígeno O de Shigella foram genomicamente integrados em uma cepa de vacinação aroA da Salmonella enterica serovar Typhimurium, que então produziu um LPS híbrido (Fält et al., Microbial Pathogenesis 20:11-30, 1996). Também, conjuntos necessários para a biossíntese do antígeno O de Salmonella dysenteriae foram clonados em um vetor de expressão estável, que foi então transferido para a cepa Ty21a de vacinação contra a febre tifóide. A cepa resultante produz LPS híbrido e induz imunidade protetora contra desafio com S. dysenteriae (DE Qui Xu et al., Vaccine 25: 6167-6175, 2007).
[0010] A Patente US 6.399.074 B1 revela uma vacina de Salmonella de vida atenuada para proteger pássaros contra infecção por micróbios gram-negativos patogênicos aviários. A vacina é uma cepa recombinante de Salmonella expressando o antígeno O de um micróbio gram-negativo patogênico aviário tal como E. coli O78 que é patogênico em aves. A cepa recombinante de Salmonella não expressa o antígeno O de Salmonella devido a uma mutação na polimerase rfz (nova nomenclatura genética wzy) do antígeno O.
[0011] Tendo em vista as técnicas anteriores acima, o objetivo da presente invenção é fornecer uma composição de vacina eficaz e segura, facilmente produzida em massa, de longa duração e com baixo custo, para prevenir e/ou tratar infecções por Campylobacter em seres humanos e animais, em particular em animais de criação, mais particularmente em aves.
[0012] Este objetivo é resolvido oferecendo-se em um primeiro aspecto uma Salmonella enterica que compreende pelo menos um operon pgl de Campylobacter jejuni ou um derivado funcional do mesmo e apresenta pelo menos um N-glicano de Campylobacter jejuni ou um derivado de N-glicano do mesmo em sua superfície celular.
[0013] A cepa de Salmonella útil na presente invenção pode ser qualquer cepa que seja ou que possa ser suficientemente atenuada para permitir sua administração não patológica em seres humanos e/ou animais na forma viva e/ou morta. Cepas de Salmonella preferidas são as cepas de Salmonella enterica selecionadas do grupo que consiste nas cepas Salmonella Typhimurium, enteriditis, heidelberg, gallinorum, hadar, agona, kentucky, typhi e infantis, mais preferivelmente nas cepas de Salmonella enterica serovar Typhimurium. A Salmonella Typhimurium é especialmente útil para uso em vacinação porque sua sequência genômica já foi completamente caracterizada e muitos estudos em animais confirmam seu uso médico seguro.
[0014] O termo "operon pgl" conforme usado neste relatório refere-se a qualquer conjunto de N-glicosilação fisiologicamente ativo de genes de C. jejuni capazes de N-glicosilar estruturas homólogas ou heterólogas produzidas pela cepa de Salmonella da invenção. O operon pgl em C. jejuni codifica todas as enzimas necessárias para a síntese do heptassacarídeo N-glicano de C. jejuni, seu transporte através da membrana interna e sua transferência para proteínas. PglD, E, F codificam as enzimas envolvidas na biossíntese de bacilosamina, PglC transfere bacilosamina fosforilada para undecaprenil-fosfato e PglA, H e J acrescentam resíduos GalNAc. A ramificação Glc é presa por PglI. A transferência do heptassacarídeo completo ocorre por meio da ação de PglK e a oligossacariltransferase PglB transfere o N-glicano para a proteína.
[0015] Um derivado funcional de um operon pgl é um conjunto de genes derivados de qualquer operon pgl de C. jejuni tendo deleções, mutações e/ou substituições de nucleotídeos ou genes integrais, porém ainda capazes de produzir um oligossacarídeo ou polissacarídeo ligável que pode ser ligado às estruturas homólogas ou heterólogas produzidas pela cepa de Salmonella da invenção. Um ou mais operons pgl ou derivados dos mesmos podem ser integrados no cromossoma da cepa de Salmonella ou eles podem ser introduzidos como parte de pelo menos um plasmídeo. A integração cromossômica é preferida porque ela é mais estável em comparação com vetores plasmídicos, cuja perda poderia ocorrer durante a propagação. Deve ser observado que a cepa de Salmonella da invenção pode compreender mais de um operon pgl ou derivado do mesmo produzindo um ou mais N-glicanos ou derivados dos mesmos. Na verdade, é preferível que a cepa da invenção tenha mais de um tipo de operon pgl resultando em mais de uma estrutura N-glicano, o que pode ser vantajoso para esclarecer uma resposta imunológica mais diversificada em um ser humano ou animal contra diferentes cepas de C. jejuni.
[0016] Deve-se observar também que o nível de expressão do N-glicano de C. jejuni pode ser opcionalmente regulado pelo uso de diferentes promotores a montante do operon pgl, incluindo, porém sem limitação, promotores de genes de proteínas ribossômicas, por exemplo spc ou rpsm assim como promotores de genes codificadores de resistência a antibióticos como bla ou promotores similares e de preferência fortes. Este tipo de regulação está disponível para operons pgl codificados por plasmídeos ou genomicamente integrados. Além disso, a estabilidade do plasmídeo pode ser opcionalmente aumentada com a inclusão de genes essenciais no plasmídeo e ao mesmo tempo com a deleção desses genes no genoma da cepa de Salmonella da invenção. Alvos preferidos abrangem, por exemplo, os genes codificando as tRNA-transferases como CysS.
[0017] Em uma modalidade preferida, a cepa de Salmonella da invenção é uma cepa compreendendo pelo menos um operon pgl, onde um ou mais genes para a biossíntese de bacilosamina são inativados por mutação e/ou por deleção parcial ou completa, de preferência por deleção parcial e/ou completa dos genes D, E, F, G. Em uma modalidade mais preferida os genes pglE, F e G do operon pgl são completamente deletados e o gene pglD é parcialmente deletado, por exemplo a estrutura de leitura aberta (ORF) de pglD termina depois de 270 pares de bases (a ORF de comprimento integral contém 612 pares de bases).
[0018] Em uma outra modalidade preferida, o gene pglB do operon pgl é inativado, o que significa que a oligossacariltransferase B correspondente ou não é expressa ou é pelo menos enzimaticamente inativada. O produto gênico pglB transfere o N-glicano para um sítio aceptor de polipeptídios específico descrito mais adiante. A inativação da transferase leva ao fato de o N-glicano ou derivado de N-glicano ser exclusivamente ligado ao núcleo do lipídio A aceptor de antígeno O na Salmonella.
[0019] Em uma modalidade mais preferida, o derivado de pgl é um derivado em que um ou mais genes para a biossíntese de bacilosamina, pg D, E, F, G, e a transferência são inativados e o gene pglB também é inativado. Esta modalidade leva à troca de GlcNAc por bacilosamina resultando na apresentação celular aumentada assim como na transferência do heptassacarídeo modificado para o núcleo do lipídio A no lugar de para aceptores de polipeptídios.
[0020] O pelo menos um N-glicano de C. jejuni ou um derivado de N-glicano do mesmo pode ser qualquer N-glicano produzido por qualquer operon pgl de Campylobacter jejuni ou um derivado funcional do mesmo. Naturalmente é preferível que o N-glicano ainda seja imunogênico, isto é, produza uma resposta imunológica específica para C. jejuni.
[0021] Em uma modalidade preferida, o N-glicano é o heptassacarídeo de fórmula (I) descrito acima, isto é, GalNAc-a1,4- GalNAc-a1,4-[Glc-ß-1,3] GalNAc-a1,4-Gal-NAc-a1,4-GalNAc-a1,3-Bac, em que Bac (também denominado bacilosamina) é 2,4-diacetamido-2,4,6-tridesóxi-D-glicopiranose.
[0022] O operon pgl preferido, em que os genes para a biossíntese de bacilosamina são inativados, de preferência majoritariamente ou completamente deletados, leva à síntese de um derivado de N-glicano, isto é, o heptassacarídeo de fórmula (II), sendo GalNAc-a1,4-GalNAc-a1,4-[Glc-ß-1,3]GalNAc-a1,4-Gal-NAc-a1,4-GalNAc-a1,3-GlcNAc.
[0023] Surpreendentemente, o derivado de N-glicano de fórmula (II) é apresentado em quantidades mais altas que o N-glicano de fórmula (I) na superfície das células das cepas de Salmonella da presente invenção e também é imunogênico. Este fato está experimentalmente confirmado na seção de exemplos abaixo.
[0024] Em uma modalidade preferida o(s) N-glicano(s) ou derivado(s) resultante(s) de pelo menos um operon pgl ou derivado do mesmo podem ser ligados a pelo menos um polipeptídio homólogo ou heterólogo de Salmonella que será eventualmente transferido e apresentado na superfície celular. De preferência o pelo menos um N-glicano ou derivado de N-glicano é ligado a um polipeptídio compreendendo pelo menos uma sequon de consenso N-Z-S/T (vide Nita-Lazar M et al., Glycobiology. 2005; 15(4):361-7), de preferência D/E - X - N - Z - S/T (SEQ ID N° 1), onde X e Z podem ser qualquer aminoácido natural exceto Pro (vide Kowarik et al. EMBO J. 2006;25(9):1957-66).
[0025] O polipeptídio ligado ao N-glicano (derivado) pode ser qualquer tipo de polipeptídio tal como um polipeptídio puro (somente aminoácidos) ou um polipeptídio pós-translacionalmente modificado, por exemplo, um polipeptídio ligado a um lipídio.
[0026] Para polipeptídios heterólogos como veículos dos (derivados de) N-glicanos é preferível que eles compreendam a sequência de sinal MKKILLSVLTTFVAVVLAAC (SEQ ID N° 2) direcionando o conjugado N-ligado para a membrana externa da célula e onde o motivo LAAC (SEQ ID N° 3) é usado para acilação do resíduo cis teína, que ancora o polipeptídio na membrana externa (vide também Kowarik et al., EMBO J. May 3;25(9):1957-66, 2006).
[0027] Na modalidade mais preferida, pelo menos um N-glicano ou derivado do mesmo resultante de pelo menos um operon pgl ou derivado do mesmo é ligado ao núcleo do lipídio A da Salmonella ou uma funcionalidade equivalente derivada do mesmo. O núcleo do lipídio A da Salmonella é uma estrutura oligossacarídica consistindo em hexoses, N-acetil-hexoses, heptoses e KDO (ácido 3-desóxi-D-mano-octulosônico) ligado por meio de duas glicosaminas a seis cadeias de ácido graxo ancorando a estrutura na membrana externa da bactéria. Um derivado funcionalmente equivalente do núcleo do lipídio A é um derivado capaz de aceitar um ou mais glicanos ou derivados dos mesmos e apresentar os mesmos na superfície celular. Observa-se que neste caso o N-glicano ou derivado do mesmo não é N-ligado porque o lipídio A da estrutura da Salmonella não é um polipeptídio. O N-glicano é de preferência ligado ao GlcII no núcleo do lipídio A ou de um derivado funcional do mesmo.
[0028] De preferência pelo menos um N-glicano ou derivado do mesmo substitui as cadeias laterais do antígeno O no LPS (lipopolissacarídeo). O núcleo interno e externo do lipídio A da Salmonella permanece inalterado ao passo que a biossíntese do antígeno O é abolida através de mutação de wbaP. O N-glicano é então transferido pela ligase WaaL do antígeno O e ligado ao resíduo GlcII da estrutura oligossacarídica do núcleo externo do lipídio A.
[0029] É preferível e para usos médicos altamente importantes que a cepa de Salmonella da invenção não provoque efeitos patogênicos quando administrada a um animal ou a um ser humano na forma viva e/ou inativada. O especialista na técnica conhece muitas maneiras de atenuar espécies virulentas de Samonella por mutação. As mutações preferidas para atenuar cepas de Salmonella para uso na presente invenção são selecionadas do grupo que consiste em pab, pur, aro, aroA, asd, dap, nadA, pncB, galE, pmi, fur, rpsL, ompR, htrA, hemA, cdt, cya, crp, phoP, phoQ, rfc, poxA e galU. Uma ou mais destas mutações podem estar presentes. As mutações aroA, cya e/ou crp são mais preferidas.
[0030] Os genes da biossíntese do antígeno O da Salmonella são agrupados no loco rfb, uma região hipervariável do DNA do cromossoma da Salmonella. Inativação parcial ou total foi associada à atenuação de cepas de Salmonella. Por outro lado, o antígeno O também é um determinante antigênico importante para induzir imunidade em um hospedeiro.
[0031] Em uma modalidade particularmente preferida, a cepa de Salmonella da presente invenção é atenuada por inativação parcial ou total da expressão do antígeno O, de preferência por uma ou mais mutações e/ou deleções no conjunto de genes rfb, mais preferivelmente no gene wbaP, e ainda mais preferivelmente deleção do gene wbaP.
[0032] Deve ficar entendido que conforme usado neste relatório, os termos "locos rfb" e "gene wbaP" pretendem abranger qualquer loco e gene correspondentes em qualquer cepa de Salmonella que seja capaz de expressar o antígeno O ou antígenos relacionados.
[0033] O produto gênico wbaP é a fosfogalactosil-transferase que inicia a biossíntese do antígeno O pela adição de fosfogalactose ao undecaprenilfosfato. Sua inativação/deleção leva à abolição completa da síntese do antígeno O, cujo açúcar produzido compete com os (derivados de) N-glicanos da C. jejuni pelo carregador lipídico undecaprenilfosfato e pela transferência pela ligase WaaL. A N-glicosilação da proteína induzida pelo loco pgl e a síntese do antígeno O wzy-dependente são processos homólogos nas bactérias. Foi descoberto que a ligase WaaL do antígeno O da Salmonella relaxou a especificidade do substrato e que ela pode transferir o N-glicano de C. jejuni para o núcleo do lipídio A da Salmonella.
[0034] Portanto, em uma modalidade mais preferida a cepa de Salmonella da invenção é mutada no gene wbaP inativando a enzima fosfogalactosil-transferase. Deve ser observado que este tipo de inativação do antígeno O ainda não foi descrito com a intenção de vacinação e é superior aos mutantes negativos para o antígeno O atualmente conhecidos, porque ela é geneticamente definida e permite aumentar a quantidade de (derivados de) N-glicanos de C. jejuni apresentados na superfície celular de cepas de Salmonella.
[0035] Por conseguinte e como uma invenção independente, a presente invenção também refere-se a uma cepa de Salmonella mutada, de preferência deletada, e, portanto, inativa no gene wbaP, que é útil para usos em vacinas de cepas de Salmonella como tais assim como cepas de Salmonella como veículos de antígenos heterólogos, de preferência glicosilados, mais preferivelmente antígenos N-glicosilados.
[0036] Em uma modalidade mais preferida, a invenção refere-se à Salmonella enterica, de preferência uma cepa serovar typhimurium, que
(a) compreende
- (i) pelo menos um operon pgl de Campylobacter jejuni ou um derivado funcional do mesmo, de preferência pelo menos um opéron pgl, onde um ou mais genes para a biossíntese de bacilosamina são inativados e
- (ii) mutações e/ou deleções no gene wbaP que levam à inativação completa da biossíntese do antígeno O,
(b) e apresenta pelo menos um N-glicano de Campylobacter jejuni ou um derivado de N-glicano do mesmo, de preferência (I) GalNAc-a1,4-GalNAc-a1,4-[Glc-ß-1,3]GalNAc-a1,4-Gal-NAc-a1,4-GalNAc-a1,3-2,4-diacetamido-2,4,6-tridesóxi-D-glicopiranose e/ou (II) GalNAc-a1,4-GalNAc-a1,4-[Glc-ß-1,3]GalNAc-a1,4-Gal-NAc-a1,4-GalNAc- a1,3-GlcNAc em sua superfície celular.
[0037] As cepas de Salmonella da invenção descritas acima são altamente imunogênicas e produzem respostas imunológicas contra infecções por C. jejuni. Além disso, depois de preparadas, elas podem ser facilmente propagadas e produzidas em massa. Como uma vantagem adicional, sua administração a um animal ou a um ser humano proporciona imunidade contra infecções por C. jejuni e Salmonella. Elas podem ser administradas como vacinas mortas ou vivas, as vacinas vivas possibilitando propagação prolongada e estímulo imunológico sistemática no hospedeiro assim como respostas imunológicas completas sem adjuvantes.
[0038] Assim sendo, a presente invenção também refere-se ao uso médico das cepas vivas ou mortas de Salmonella da presente invenção, em particular para preparar um medicamento, de preferência uma vacina.
[0039] De preferência, o medicamento é útil para a prevenção e/ou o tratamento de infecções por Campylobacter jejuni e opcionalmente por Salmonella, de preferência infecções em animais de criação, mais preferivelmente em gado bovino e aves, ainda mais preferivelmente em aves tais como frangos, perus, gansos e patos.
[0040] Um terceiro aspecto da presente invenção refere-se a uma composição farmacêutica, alimento ou ração (aditivo) compreendendo a Salmonella enterica morta ou viva da presente invenção e um excipiente fisiologicamente aceitável.
[0041] Por exemplo, uma composição farmacêutica da presente invenção pode ser preparada por crescimento em média ou grande escala das cepas de Salmonella da invenção contendo seja pelo menos um operon pgl codificado por plasmídeo ou integrado em um cromossoma ou um derivado do mesmo. Estas cepas de Salmonella podem ser usadas diretamente ou podem ser formuladas para acomodar o alvo específico do ser humano ou animal e a via de administração específica. Composições farmacêuticas compreendendo Samonella viva são preferidas por motivos óbvios.
[0042] Alternativamente, a invenção refere-se a um alimento ou ração para seres humanos ou animais, de preferência animais de criação, mais preferivelmente aves, compreendendo a Salmonella enterica morta ou viva da presente invenção e um excipiente fisiologicamente aceitável e/ou substâncias de grau alimentício. Por exemplo, tal ração pode reduzir bastante a colonização por C. jejuni de bandos de aves e consequentemente reduzir a chance de infecções humanas por C. jejuni e também de infecções por Salmonella através de carne contaminada.
[0043] Um quarto aspecto da presente invenção refere-se a um método para o tratamento e/ou a prevenção de infecções por C. jejuni e opcionalmente de infecções por Salmonella, compreendendo a administração de uma composição farmacêutica, alimento ou ração à base de Salmonella enterica da presente invenção a um ser humano ou animal com necessidade da mesma em uma quantidade fisiologicamente ativa.
[0044] Para uso terapêutico e/ou profilático, as composições farmacêuticas da invenção podem ser administradas em qualquer forma de dosagem convencional de qualquer maneira convencional. As vias de administração incluem, porém sem limitação, as vias intravenosa, intramuscular, subcutânea, intranasal, intrassinovial, por infusão, sublingual, transdérmica, oral (por exemplo, gavagem), tópica ou por inalação. Os modos de administração preferidos são oral, intravenoso e intranasal, oral e intranasal sendo mais preferidos.
[0045] A Salmonella da invenção pode ser administrada isolada ou em combinação com adjuvantes que aumentam a estabilidade e/ou a imunogenicidade da bactéria, facilitam a administração das composições farmacêuticas que os contém, proporcionam dissolução ou dispersão aumentadas, aumentam a atividade de propagação, proporcionam terapia adjunta, entre outros, inclusive outros princípios ativos.
[0046] As formas farmacêuticas de dosagem da Salmonella descrita nesta invenção incluem veículos e/ou adjuvantes farmaceuticamente aceitáveis conhecidos pelos especialistas na técnica. Estes veículos e adjuvantes incluem, por exemplo, trocadores de íons, alumina, estearato de alumina, lecitina, proteínas séricas, substâncias tamponantes, água, sais, eletrólitos, substâncias à base de celulose, gelatina, água, petrolato, óleo animal ou vegetal, óleo mineral ou sintético, solução salina, dextrose ou outros compostos sacarídios e glicólicos tais como etileno glicol, propileno glicol ou polietileno glicol, antioxidantes, lactato etc. As formas de dosagem preferidas incluem comprimidos, cápsulas, soluções, suspensões, emulsões, pós-reconstituíveis e emplastros transdérmicos. Métodos para preparar as formas de dosagem são bastante conhecidos, vide, por exemplo, H. C. Ansel & N. G. Popovish, Pharmaceutical Dosage Forms and Drug Delivery Systems, 5th ed., Lea & Febiger (1990) e, em particular, Pastoret et al., Veterinary Vaccinology, Elsevier March 1999). Os níveis e as necessidades de dosagem são bastante conhecidos na literatura e podem ser escolhidos pelos especialistas na técnica entre os métodos e técnicas disponíveis adequados para um paciente particular. Como o especialista na técnica vai perceber, doses mais baixas ou mais altas podem ser necessárias dependendo de fatores particulares. Por exemplo, as doses e os regimes de tratamento específicos vão depender de fatores tais como o perfil de saúde geral do paciente (humano ou animal), a gravidade e o curso do distúrbio do paciente ou predisposição do paciente ao mesmo, e o critério ou médico ou veterinário assistente.
[0047] Em uma modalidade preferida para vacinação oral, o regime consiste na administração de Salmonella contendo o operon pgl ou derivado do mesmo seja em plasmídeo ou integrado no cromossoma no 1° ou 2° dia após a chocagem dos pintos com cerca de 106 cfu (unidades formadoras de colônias) por pinto com um reforço no 14° ou 21° dia após a chocagem com a mesma quantidade de bactérias. Estas duas administrações vão proporcionar estímulo suficiente para o sistema imunológico produzir uma resposta contra N-glicano de C. jejuni ou contra derivados do mesmo e também contra proteínas de Salmonella para proporcionar proteção contra uma posterior colonização dos frangos. Uma alternativa para a vacinação de pintos é por injeção intravenosa da bactéria inativada, por exemplo, inativada por calor ou inativada por formalina no 1° ou 2° dia após a chocagem e um reforço no 14° ou 21° dia. Como uma outra alternativa, os pintos também podem ser vacinados apenas uma vez em um momento posterior com até 3 semanas de idade, seja por via intravenosa com a bactéria inativada por calor ou inativada por formalina ou por via intragástrica com a bactéria viva.
[0048] E por fim, porém não menos importante, a presente invenção refere-se a um método para produzir Salmonella enterica de acordo com a invenção, compreendendo as etapas de
- (i) introduzir na Salmonella enterica, de preferência por pelo menos um vetor plasmídico ou por integração genômica, pelo menos um operon pgl de C. jejuni ou um derivado funcional do mesmo, de preferência pelo menos um operon pgl, onde um ou mais, de preferência todos os genes para a biossíntese de bacilosamina são inativados, e
- (ii) de preferência introduzir mutações e/ou deleções no gene wbaP levando à inativação completa da biossíntese do antígeno O.
[0049] A seguir, a presente invenção será ainda ilustrada com referência a modalidades específicas e a experiências que não devem ser interpretadas como limitativas do escopo da invenção apresentadas pelas reivindicações anexas.
FIGURAS
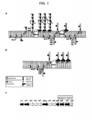
[0050] A figura 1 é uma ilustração esquemática de uma exibição de N-glicano de C. jejuni em S. enterica sv. Typhimurium.
- A) mostra a transferência de N-glicano de C. jejuni para um núcleo do lipídio A de S. Typhimurium em uma cepa produtora do antígeno O e apresentando o operon pglmut ("mut" significa que PglB é inativado por 2 mutações pontuais);
- B) mostra a S. Typhimurium cepa ΔwbaP sem antígeno O e apresentando um operon pgl3mut no qual os genes para a biossíntese de bacilosamina são deletados;
- C) ilustra as deleções no operon pgl3mut.
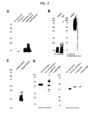
[0051] A figura 2 demonstra a exibição de N-glicanos de C. jejuni em S. enterica sv. Typhimurium
- A) mostra um imunoblot de N-glicano antiC. jejuni de um SDS-PAGE de extratos de células integrais do tipo selvagem e ΔwbaP tratados com proteinase K de S. Typhimurium de cepas portadoras dos plasmídeos indicados e demonstra a exibição de N-glicano de C. jejuni no núcleo do lipídio A de S. Typhimurium.
- B) é um SDS-PAGE colorido com prata (quadro da esquerda) e um imunoblot do antígeno O grupo B anti-Salmonella (quadro da direita) de um SDS-PAGE de extratos de células integrais do tipo selvagem e ΔwbaP tratados com proteinase K de S. Typhimurium. Ele confirma a falta do antígeno O polimérico na cepa ΔwbaP.
- C) mostra um imunoblot de N-glicano antiC. jejuni de um SDS-PAGE de S. Typhimurium cepa ΔwbaP com um vetor vazio integrado (controle) ou com um operon pgl3mut integrado e comprova a expressão de N-glicano de C. jejuni no núcleo do lipídio A de S. Typhimurium ΔwbaP com um operon pgl3mut integrado.
- D) retrata no quadro da esquerda um imunoblot usando soro de um camundongo infectado por via intravenosa com S. Typhimurium ΔwbaP morta por calor apresentando N-glicano de C. jejuni com GlcNAc na extremidade de redução e codificada por pgl3mut. O reconhecimento de células C. jejuni do tipo selvagem, mas não de células 81-176pglB de C. jejuni, é evidente. O quadro da direita mostra um SDS-PAGE corado com Coomassie das amostras usadas na análise do imunoblot do soro de camundongos.
[0052] A figura 3 retrata os testes in vitro usados para demonstrar a atenuação de S. Typhimurium ΔwbaP
- A) mostra uma sensibilidade aumentada de S. Typhimurium ΔwbaP ao complemento em soro humano: a morte mediada por complemento da cepa do tipo selvagem de serovar Typhimurium resistente à canamicina, M939, ΔwbaP::cat negativa para antígeno O (SKI11) e ΔwbaP::pKI9 mutante complementada (SKI33) foi testada por incubação de uma mistura 1:1:1 de Salmonella do tipo selvagem, ΔwbaP e ΔwbaP::pKI9 (SKI33) para os tempos indicados junto com 20% de soro humano ou 20% de soro humano inativado por calor. A sobrevivência foi analisada por plaqueamento em meios de diferenciação.
- B) representa o resultado da configuração experimental de A), porém diferindo no uso de soro inativado por calor. Nenhuma das cepas teve sua sobrevivência afetada.
- C) ilustra a deficiência de S. Typhimurium ΔwbaP na motilidade de natação comparada com a S. Typhimurium do tipo selvagem e com cepa imóvel fliGHI:Tn10.
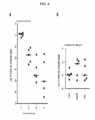
[0053] A figura 4 demonstra uma capacidade de colonização reduzida para S. Typhimurium ΔwbaP em um experimento de coinfecção com S. Typhimurium tipo selvagem.
- A) representa graficamente os índices de competitividade (CI; (mutante/tipo selvagem) saída / (mutante/tipo selvagem) entrada) de serovar Typhimurium ΔwbaP (SKI12) e tipo selvagem determinados 1-3 dias após infecção em fezes e 4 dias após infecção no conteúdo cecal demonstrando uma capacidade de colonização reduzida de S. Typhimurium ΔwbaP quando comparada com o tipo selvagem.
- B) CI no mLN, baços e fígados 4 dias após a infecção.
EXEMPLOS
CEPAS BACTERIANAS E CONDIÇÕES DE CRESCIMENTO
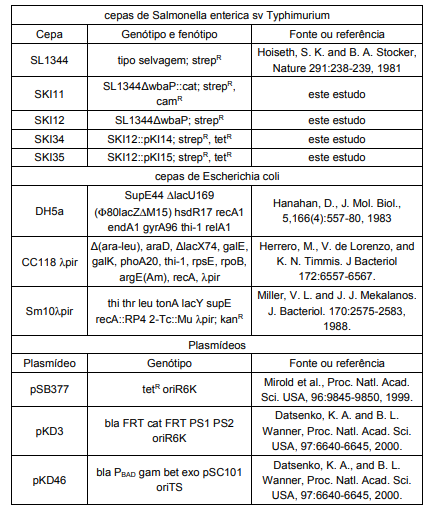
[0054] Um sumário das cepas bacterianas usadas para as experiências relacionadas nos exemplos está apresentado na tabela 1. As bactérias foram desenvolvidas em meio Luria-Bertani (LB) (10 g/l triptona Bacto, 5 g/l extrato de levedura Bacto, 5 g/l NaCl). Placas de LB ágar foram suplementadas com 1,5% (p/v) de ágar. Os antibióticos foram usados nas seguintes concentrações finais: ampicilina (amp) a 100 μg/ml, canamicina (kan) a 50 μg/ml, cloranfenicol (cam) a 25 μg/ml, estreptomicina (strep) a 50 μg/ml, tetraciclina (tet) a 10 μg/ml.
Exemplo 1 - Exibição de N-glicano de C. jejuni no núcleo do lipídio A de Salmonella enterica sv. Typhimurium
[0055] A biossíntese do antígeno O Wzy-dependente e a biossíntese de N-glicano de C. jejuni são processos homólogos (Feldman et al., Proc. Natl. Acad. Sci. USA.;102(8):3016-21, 2005) que começam ambos com a união de uma estrutura oligossacarídica a um ligador undecaprenilpirofosfato. A homologia das duas vias assim como a especificidade para substrato relaxada da S. enterica sv. Typhimurium antígeno O ligase WaaL (Fält et al., Microbial Pathogenesis 20:11-30, 1996; De Qui Xu et al., Vaccine 25: 6167-6175, 2007) foi explorada quanto à possibilidade de combinar as duas vias para exibir o N-glicano de C. jejuni no núcleo do lipídio A de Salmonella.
[0056] Um plasmídeo contendo o operon pglmut de C. jejuni com PglB inativado (pACYCpglmut; Wacker et al. 2002) foi introduzido em uma cepa de Salmonella enterica serovar Typhimurium por eletroporação. Como controle negativo o vetor vazio correspondente pACYC184 foi usado.
[0057] Os glicoconjugados dos transformantes foram testados quanto à exibição do N-glicano de C. jejuni por SDS-PAGE e subsequente imunoblot com um antissoro de N-glicano antiC. jejuni (Amber 2008). As amostras foram preparadas da seguinte maneira: O equivalente de 2 OD600/ml de culturas em crescimento na fase log de S. enterica sv Typhimurium contendo seja pACYC184 seja pACYpglmut foi centrifugado a 16.000 g por 2 minutos e o sobrenadante foi descartado. As células foram ressuspendidas em 100 μl de tampão de amostra Lämmli (Tris-HCl 0,065 M pH 6,8, 2 % SDS (p/v), 5 % β-mercaptoetanol (v/v), 10 % de glicerina (v/v), 0,05 % de azul de bromofenol (p/v)) e lisadas por 5 minutos a 95°C. Depois de esfriar para a temperatura ambiente, proteinase K (Gibco/Life Technologies) foi adicionada (concentração final 0,4 mg/ml) e incubada por 1 hora a 60 °C antes de carregar quantidades iguais para uma eletroforese em gel de dodecilsulfato de sódio poliacrilamida a 15 % (SDS-PAGE). Para detectar N-glicano de C. jejuni, um antissoro policlonal de coelho contra N-glicano de C. jejuni foi usado (S. Amber, PhD.-thesis, ETH Zurique, Department of Biological Science. Zurique, 2008). A visualização dos sinais foi feita com o conjugado IgG-HRP de cabra anticoelho (Santa Cruz) e ECL (Amersham) conforme recomendação do fabricante.
[0058] N-glicano de C. jejuni pôde ser detectado no núcleo do lipídio A de S. enterica sv. Typhimurium quando pACYCpglmut estava presente nas células (figura 2A faixa 2) mas não quando o vetor vazio havia sido introduzido nas células (figura 2A faixa 1). Isto mostra que a S. enterica sv Typhimurium WaaL transfere N-glicano de C. jejuni do undecaprenilpirofosfato para o núcleo do lipídio A.
Exemplo 2 - Construção de uma deleção wbaP em Salmonella enterica sv Typhimurium e exibição aumentada de N-glicano de C. jejuni na cepa negativa para o antígeno O
[0059] Foi suposto que a deleção da biossíntese do antígeno O abolia a competição entre a via da biossíntese do antígeno O e a biossíntese de N-glicano de C. jejuni para o undecaprenilfosfato veículo de lipídio.
[0060] A construção de um mutante por deleção de wbaP da S. Typhimurium tipo selvagem SL1344 foi feita da maneira descrita (Datsenko & Wanner, PNAS USA 97(12): 6640-5, 2000). Os iniciadores RfbP H1P1 (para sequência vide tabela 1) e RfbP H2P2 combinando com o DNA gabarito do plasmídeo pKD3, que é portador de um gene de resistência ao cloranfenicol flanqueado por sítios FRT (alvo de reconhecimento de FLP) foram sintetizados. Estes iniciadores também contêm 40 a 45 nucleotídeos adicionais correspondendo a regiões diretamente a montante e a jusante do gene wbaP. Eles foram usados para amplificar um cassete de genes para deleção "in frame" de wbaP da maneira descrita (Datsenko & Wanner, vide acima). Depois da expressão induzida por arabinose da λ Red recombinase do plasmídeo pKD46 em S. Typhimurium tipo selvagem cepa SL1344 a recombinase trocou o gene-alvo pelo cassete de cloranfenicol do produto de PCR introduzido por eletroporação. Os transformantes foram selecionados por plaqueamento em placas de clorafenila a 37° C por uma noite e a presença do gene cat na posição correta no genoma foi confirmada por PCR. O clone resultante resistente à cloranfenila (wbaP::cat) foi denominado SKI11. A remoção do cassete de resistência a cloranfenicol foi possível usando pCP20 codificando a FLP recombinase reconhecendo as regiões FRT flanqueadoras e a cepa resultante foi denominada SKI12 depois de verificação por PCR (vide também Ilg, Endt et al., Inf. Immun., 77, 2568, June 2009).
[0061] Análise fenotípica dos glicoconjugados da cepa resultante foi realizada por SDS-PAGE seguida por subsequente coloração dos glicoconjugados com prata. Para SDS-PAGE, as amostras foram preparadas das seguintes maneiras: O equivalente de 2 OD600/ml de culturas em crescimento na fase log de S. Typhimurium tipo selvagem ou S. Typhimurium ΔwbaP (SKI12) foi centrifugado a 16.000 g por 2 minutos e o sobrenadante foi descartado. As células foram ressuspendidas em 100 μl de tampão de amostra Lämmli (Tris-HCl 0,065 M pH 6,8, 2 % SDS (p/v), 5 % ß-mercaptoetanol (v/v), 10 % glicerina (v/v), 0,05 % azul de bromofenol (p/v)) e lisadas por 5 minutos a 95°C. Depois de esfriar para a temperatura ambiente, proteinase K (Gibco/Life Technologies) foi adicionada (concentração final 0,4 mg/ml) e incubada por 1 hora a 60 °C antes de carregar qua ntidades iguais para uma eletroforese em gel de dodecilsulfato de sódio poliacrilamida a 12 % (SDS-PAGE). Para detectar o antígeno O de S. Typhimurium, antissoro O de Salmonella grupo B fatores 1,4, 5, 12 (Difco) foi usado. A visualização dos sinais foi feita com o conjugado IgG-HRP de cabra anticoelho (Santa Cruz) e ECL (Amersham) conforme recomendação do fabricante. Para coloração, o método de Tsai e Frasch foi usado (Tsai & Frasch, Anal. Biochem. 119(1): 115-9, 1982).
[0062] A deleção do gene codificando a fosfogalactosil-transferase WbaP em S. enterica tipo selvagem levou à abolição da biossíntese do antígeno O como visível na figura 2B. SDS-PAGE com subsequente coloração dos glicoconjugados com prata assim como uma SDS-PAGE seguida por um imunoblot com antiantissoro O específico para Salmonella grupo B mostram o padrão de escada de lipopolissacarídeos típico do antígeno O polimérico para a S. enterica sv. Typhimurium cepa tipo selvagem e a ausência deste padrão na cepa ΔwbaP.
[0063] Esta S. enterica sv. Typhimurium ΔwbaP SKI12 negativa para o antígeno O foi testada quanto a sua capacidade de exibir N-glicano de C. jejuni em sua superfície celular. Os plasmídeos pACYCpglmut ou pACYC184 foram introduzidos por eletroporação. Os glicoconjugados para os transformantes foram analisados da maneira descrita no exemplo 1. Foi possível detectar N-glicano de C. jejuni em intensidades mais altas na faixa contendo a cepa ΔwbaP em comparação com o tipo selvagem (figura 2A faixa 4 versus faixa 2). Não foi possível detectar N-glicano de C. jejuni quando o vetor vazio pACYC184 estava presente na S. enterica sv. Typhimurium ΔwbaP SKI12. Isto demonstra que na cepa ΔwbaP mais N-glicano de C. jejuni é transferido para o núcleo do lipídio A.
Exemplo 3: Construção de um operon pglmut de C. jejuni alterado levando a uma exposição aumentada de N-glicano de C. jejuni em Salmonella enterica sv. Typhimurium
[0064] Na C. jejuni, o N-glicano é sintetizado como o heptassacarídeo GalNAc5(Glc)-Bac, onde Bac, o açúcar na extremidade de redução, é 2,4-diacetamido-2,4,6-tridesóxi-glicopiranose. Em E. coli e S. Typhimurium Bac não é sintetizado a não ser que o mecanismo de biossíntese do N-glicano de C. jejuni seja expresso de forma heteróloga. Foi mostrado que em células de E. coli tipo selvagem coexpressando o mecanismo de biossíntese do N-glicano de C. jejuni são sintetizados dois tipos diferentes de N-glicano, um com Bac na extremidade de redução e um com GlcNAc. Este fenômeno pôde ser atribuído à ação de WecA, uma UDP-GlcNAc: undecaprenilfosfato GlcNAc-1-fostato transferase envolvida na biossíntese de glicolipídios (Linton D. et al., Mol. Microbiol.,55(6):1695-703, 2005). Como sabemos que a Salmonella enterica sv Typhimurium antígeno O ligase WaaL pode transferir estruturas contendo GlcNAc para o núcleo do lipídio A foi especulado que um N-glicano contendo GlcNAc seria um melhor substrato para WaaL do que um N-glicano contendo Bac. Foi construído um operon pglmut que foi deletado nos genes para a biossíntese de bacilosamina, a saber pglD,E,F,G. Os genes codificando PglE, F, G foram completamente deletados ao passo que um gene codificando PglD foi parcialmente deletado. A estrutura de leitura aberta (ORF) pglD no operon pgl alterado termina depois de 270 pares de bases ao passo que a ORF de comprimento integral contém 612 pares de bases. O procedimento para construir este operon pglmut alterado foi realizado usando E. coli DH5a como a cepa hospedeira para propagação do plasmídeo e é o seguinte: pACYCpglmut DNA foi digerido com Alw44I e SmaI, e em seguida a projeção Alw44I foi introduzida com o fragmento DNA polimerase I Klenow e religada. O operon resultante foi denominado pACYCpgl3mut e foi transformado na cepa ΔwbaP. Os glicoconjugados dos transformantes resultantes foram analisados da maneira descrita no exemplo 1. Foi possível N-glicano de C. jejuni em intensidades mais altas na faixa contendo a cepa ΔwbaP com o operon pgl3mut do que na faixa contendo a cepa ΔwbaP sem o operon pglmut, quando comparada com o tipo selvagem (figura 2A faixa 5 versus faixa 4). Considerando-se tudo isto, a cepa ΔwbaP com pgl3mut mostra as intensidades mais altas quando investigada com antissoro de N-glicano antiC. jejuni e portanto demonstra os níveis mais altos de N-glicano de C. jejuni exibidos no núcleo do lipídio A de Salmonella enterica sv Typhimurium.
Exemplo 4: Integração do operon pgl3mut no genoma de Salmonella enterica sv Typhimurium cepa Δ wbaP negativa para o antígeno O
[0065] Para garantir exibição contínua do N-glicano de C. jejuni no núcleo do lipídio A de Salmonella enterica sv Typhimurium cepa ΔwbaP in vivo, o operon pgl3mut foi integrado no genoma da cepa ΔwbaP SK112 a jusante do gene pagC.
[0066] Todas as etapas de clonagem envolvendo um plasmídeo suicida com o oriR6K foram efetuadas em E. coli CC118λpir. O plasmídeo suicida integrativo final pK115 foi construído da seguinte maneira: Uma sequência de 512 bp homóloga à região-alvo no genoma de Salmonella foi amplificada por PCR com os iniciadores 3' PagC Fw NotI e 3' PagC Rev SacII (vide sequência na tabela 1). O fragmento de DNA resultante foi inserido com SacII e NotI no pSB377 e o plasmídeo foi denominado pK114 depois de verificação da sequência de inserção. O PKI15 foi construído por digestão de DNA de pACYCpgl3mut com BamHI e EheI com digestão simultânea de pK114 com BamHI e SmaI. O fragmento de 11083 bp cortado do pACYCpgl3mut foi então ligado com o esqueleto de pK114. Como a eletroporação de plasmídeos suicidas em cepas de Salmonella é muito ineficiente, os pK115 ou pK114 foram primeiro introduzidos em E. coli Sm101pir para conjugação por eletroporação. Sm101pir contendo pK115 ou pK114 foi então conjugada com SKI12. Para conjugação os equivalentes de 4 OD600 de culturas em fase log tardia de Sm101pir contendo pK115 e SKI12 foram centrifugados e lavados três vezes com 1 ml de LB. As pelotas foram ressuspendidas em 100 μl de LB, combinadas e espalhadas com um diâmetro de 3 cm sobre uma placa de LB ágar que foi então incubada por uma noite a 37° C. As bactérias foram removidas da placa por meio de lavagem desta na manhã seguinte com 1 ml de LB e diversas diluições plaqueadas sobre LB (+strep+tet) buscando conjugantes. As cepas resultantes foram denominadas SKI34 (SKI 12::pK114) e SKI35 (SKI12::pKI15).
[0067] Para analisar a presença de N-glicano de C. jejuni no núcleo do lipídio A das cepas negativas para o antígeno O contendo ou o conjunto pgl3mut integrado ou o vetor vazio integrado como um controle negativo, extratos de células integrais de SKI34 e SKI35 foram preparados e analisados da maneira descrita no exemplo 1. A figura 2C é um imunoblot detectado com antissoro de N-glicano de antiC. jejuni que mostra sinais intensos na faixa 2 contendo SKI35, porém nenhum sinal para a faixa 1 contendo SKI34. Isto demonstra a transferência eficiente de N-glicano de C. jejuni para o núcleo do lipídio A de Salmonella enterica sv Typhimurium de um operon pgl3mut integrado.
Exemplo 5: Imunogenicidade do glicano codificado pelo operon pgl3mut
[0068] Para investigar a imunogenicidade do glicano codificado por pgl3mut camundongos foram infectados com bactérias SKI12 +pMLpgl3mut inativadas por calor e o soro dos mesmos foi testado quanto à presença de anticorpos N-glicano antiC. Jejuni. A experiência foi realizada da seguinte maneira:
Experiências com infecção em camundongos
[0069] Infecções por Salmonella foram realizadas em gaiolas individualmente ventiladas no RCHCI, Zurique, de maneira já descrita (Stecher, Hapfelmeier et al., Infection Infect Immun. 2004 Jul;72(7):4138-50 2004). Para a infecção intravenosa os camundongos receberam uma injeção de 5 x 10⁵ CFU de S. Typhimurium SL1344ΔwbaP inativada com calor (SKI12) e portadora de pMLBAD (controle) ou pMLpgl3mut na veia terminal. Depois da análise dos soros no 29° dia após a infecção, os camundongos receberam novamente uma injeção das mesmas cepas bacterianas no 36° dia e os soros foram analisados no 50° dia.
Análise do soro dos camundongos
[0070] Os soros dos camundongos foram analisados quanto à produção de anticorpos para Ν-glicano de antiC. jejuni pelo imunoblot contra extratos de células integrais de 81-176 e 81-176pglB de C. jejuni (controle negativo). 81-176pglB de C. jejuni não produz proteínas glicosiladas e serviu como controle negativo. Extratos de células integrais foram preparados por colheita de C. jejuni de placas com crescimento bacteriano confluente com 1 ml de PBS. Depois de ajustar as amostras com PBS à mesma densidade ótica, as células foram coletadas por centrifugação por 2 minutos a 16000 x g à temperatura ambiente. As células foram lisadas por 5 minutos a 95° C em tampão de amostra Lämmli (Tris-HCl a 0,065M pH 6,8, 2% de SDS (p/v), 5% de β-mercaptoetanol (v/v), 10% de glicerina (v/v), 0,05% de azul de bromofenol (p/v)) adicionado até completar os mesmos volumes finais que aqueles determinados anteriormente com PBS para dar a mesma quantidade de células em cada amostra. Isto foi confirmado separando-se volumes iguais de cada amostra por SDS-PAGE seguido por coloração das proteínas com azul de Coomassie. Adicionalmente, a proteína AcrA glicosilada e não glicosilada foi usada para visualização de uma resposta imunológica contra N-glicano de C. jejuni. Para análise dos soros dos camundongos, volumes iguais dos extratos de células integrais assim como quantidades de AcrA glicosilada e não glicosilada foram separados por SDS-PAGE seguido pela transferência das proteínas para uma membrana de fluoreto de polivinilideno para detecção de imunoblot. Os soros dos camundongos serviram como antissoros primários na primeira etapa de incubação. IgG ligadas foram identificadas por um conjugado IgG-HRP anticamundongo (Bethyl Laboratories). A detecção foi realizada com ECL (Amersham) de acordo com a instrução do fabricante.
[0071] A figura 2D) mostra a presença de N-glicano-IgG antiC. jejuni nos soros dos camundongos 61 dias após reinfecção. Os anticorpos não reconheceram a AcrA não glicosilada nem os extratos de proteína não glicosilados de C. jejuni mostrando assim especificidade para o glicano. Não foi possível observar qualquer reação específica para N-glicano de C. jejuni com os soros dos camundongos infectados com as cepas de controle (dados não mostrados).
Exemplo 6: Fenótipo atenuado de S. Typhimurium ΔwbaP
[0072] A atenuação de S. Typhimurium ΔwbaP foi testada em várias abordagens in vitro e uma abordagem in vivo. A abordagem in vitro consistiu em testar o mutante assim como o tipo selvagem quanto a sua resistência sérica, motilidade e resistência à polimixina B mímica de peptídio antimicrobiano. A capacidade de colonização da ΔwbaP foi analisada em uma experiência de coinfecção in vivo.
Análise da resistência sérica
[0073] A atividade bactericida do complemento foi testada essencialmente da maneira descrita (Bengoechea, Najdenski et al. 2004). Em suma, serovar Typhimurium wbaP::cat (SKI11), M939, um derivado resistente à canamicina de serovar Typhimurium cepa SL1344 do tipo selvagem (aph integrado a jusante de sopE) e células de serovar Typhimurium ΔwbaP::pKI9 (SKI33) retiradas de culturas em crescimento exponencial foram misturadas em quantidades iguais (3x10⁸ cfu/ml para M393; 4x10⁸ cfu/ml para SKI11 e SKI33) e diluídas 5x10⁴ vezes antes do uso em 1 x PBS estéril. Esta cultura bacteriana diluída foi misturada 1:1 com 20 % de soro humano não contendo anticorpos contra serovar Typhimurium LPS e incubada a 37° C com leve agitação. Alíquotas foram retiradas em 0, 15 e 30 minutos depois da mistura e a atividade do complemento foi extinguida por adição de Caldo Infusão de Cérebro e Coração. As alíquotas foram mantidas em gelo até serem plaqueadas em LB (strep, kan) selecionando para o tipo selvagem, LB (Sm, Cam) selecionando para wbaP::cat e LB (Sm, Tet) para determinar a CFU de ΔwbaP::pKI9. O mesmo experimento foi realizado usando soro onde o complemento foi inativado por calor a 56° C por 30 minutos. Os dados estão mostrados como a média de log CFU ± desvios-padrão. A figura 3A mostra a resistência sérica diminuída de S. Typhimurium ΔwbaP quando comparada com o tipo selvagem. Depois de 30 minutos de incubação com 20% de soro humano as contagens para ΔwbaP foram sessenta vezes mais baixas que no início do período de incubação. A figura 3B representa as mesmas cepas incubadas com soro inativado por calor como controle negativo.
Ensaio da motilidade de natação
[0074] Como a motilidade das bactérias é um fator de virulência conhecido a motilidade das bactérias foi testada em placas de ágar mole (0,3% (p/v) ágar, 5 g/l de NaCl, 10 g/l de Bacto triptona). 1 μl de culturas de uma noite de serovar Typhimurium tipo selvagem (SL1344), serovar Typhimurium ΔwbaP (SKI12), serovar Typhimurium ΔwbaP::pKI9 (SKI33) ou serovar Typhimurium fliGHI::Tn10 (M933) foram colocados no meio das placas e a motilidade foi quantificada medindo-se o diâmetro da halo visível depois de 4,75 horas e 9,5 horas de incubação a 37°C. Cada experimento foi realizado em triplicata em duas ocasiões diferentes e os dados estão mostrados como a média ± desvios-padrão. Como visível na figura 3C a motilidade foi fortemente reduzida em ΔwbaP (SK112) em comparação com o tipo selvagem, porém ainda mais alta que no controle sem motilidade fliGHI::Tn10
Análise da resistência à polimixina B
[0075] O equivalente de 1 OD600/ml de culturas em crescimento exponencial de serovar Typhimurium tipo selvagem cepa SL1344 ou serovar Typhimurium ΔwbaP (SKI12) foi centrifugado, ressuspendido em 150 μl de 1x PBS estéril frio e diluído 5x 10⁶ vezes antes do uso. Para o ensaio, 45 μl das culturas diluídas foram misturados com 5 μl de polimixina B (Sigma, 1 μg/ml concentração final) ou 5 μl de PBS e incubados por 1 hora a 37° C com leve agitação. Depois da adição de 80 μl de LB, as bactérias foram plaqueadas em placas de LB-ágar contendo estreptomicina. A eficiência de sobrevivência foi calculada dividindo-se a CFU (unidades formadoras de colônias) da cultura tratada com peptídio pela CFU da cultura não tratada e multiplicando-se por 100. O ensaio foi realizado em triplicata em dois experimentos independentes e os dados estão mostrados como a média ± desvios-padrão. A resistência diminuída à polimixina B da S. Typhimurium ΔwbaP em comparação com o tipo selvagem está mostrada na figura 3D.
Capacidade de colonização de ΔwbaP em uma experiência de coinfeccão
[0076] A capacidade de colonização da S. Typhimurium ΔwbaP foi testada em uma experiência de coinfecção na qual camundongos foram infectados por via intragástrica com a ΔwbaP mutante assim como a cepa do tipo selvagem. Camundongos C57BL/6 (SPF; colônia da RCHCI, Zurique) foram previamente tratados por gavagem com 20 mg de estreptomicina. Após 24 horas, os camundongos foram inoculados com 5x 10⁷ CFU da cepa serovar Typhimurium ou com misturas de cepas conforme indicado. As cargas bacterianas (CFU) em pelotas fecais frescas, nodos linfáticos mesentéricos (mLNs), baço, e conteúdo cecal foram determinadas por plaqueamento em placas de ágar MacConkey (50 μg/ml de estreptomicina) de maneira já descrita (Barthel, Hapfelmeier et al. 2003). Os índices de competitividade (CI) foram determinados de acordo com a fórmula CI = (mutante/tipo selvagem) saída / (mutante/tipo selvagem) entrada depois do plaqueamento. Uma experiência de coinfecção de serovar Typhimurium tipo selvagem (M939) e da cepa ΔwbaP (SKI11) foi realizada. 5 camundongos tratados com estreptomicina foram infectados por via intragástrica com uma mistura 1:2 (total 5x 10⁷ CFU) da cepa ΔwbaP (SKI11) e da cepa do tipo selvagem. A relação das 2 cepas (CI; índice de competitividade, vide Materiais e Métodos) foi determinada nas fezes no 1°, 2° e 3° dias p.i. Uma diminuição nas contagens da ΔwbaP em comparação com o tipo selvagem foi detectada (escala de um log por dia) e comprovou que a cepa ΔwbaP (SKI11) apresentava realmente uma grave deficiência de competitividade em comparação com a cepa do tipo selvagem serovar Typhimurium no trato intestinal (p >0.05; figura 4A). Além disso, o CI das duas cepas em sítios sistêmicos (mLN, fígado, baço) no 4° dia p.i. também demonstrou uma deficiência de competitividade significativa da serovar Typhimurium ΔwbaP (SK112). Não obstante, a deficiência foi menos significativa que no intestino (figura 4B).
TABELA 1: Cepas, plasmídeos e iniciadores para deleção de wbaP usados neste estudo
Continuação