CN1114876C - 用计算机辅助鉴定红细胞生成素的潜在模拟物的方法及由该方法筛选出化合物 - Google Patents
用计算机辅助鉴定红细胞生成素的潜在模拟物的方法及由该方法筛选出化合物 Download PDFInfo
- Publication number
- CN1114876C CN1114876C CN97195838A CN97195838A CN1114876C CN 1114876 C CN1114876 C CN 1114876C CN 97195838 A CN97195838 A CN 97195838A CN 97195838 A CN97195838 A CN 97195838A CN 1114876 C CN1114876 C CN 1114876C
- Authority
- CN
- China
- Prior art keywords
- peptide
- epo
- receptor
- residues
- phe
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Fee Related
Links
Images


Classifications
-
- G—PHYSICS
- G01—MEASURING; TESTING
- G01N—INVESTIGATING OR ANALYSING MATERIALS BY DETERMINING THEIR CHEMICAL OR PHYSICAL PROPERTIES
- G01N33/00—Investigating or analysing materials by specific methods not covered by groups G01N1/00 - G01N31/00
- G01N33/48—Biological material, e.g. blood, urine; Haemocytometers
- G01N33/50—Chemical analysis of biological material, e.g. blood, urine; Testing involving biospecific ligand binding methods; Immunological testing
- G01N33/74—Chemical analysis of biological material, e.g. blood, urine; Testing involving biospecific ligand binding methods; Immunological testing involving hormones or other non-cytokine intercellular protein regulatory factors such as growth factors, including receptors to hormones and growth factors
- G01N33/746—Erythropoetin
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/001—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof by chemical synthesis
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/475—Growth factors; Growth regulators
- C07K14/505—Erythropoietin [EPO]
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K7/00—Peptides having 5 to 20 amino acids in a fully defined sequence; Derivatives thereof
- C07K7/04—Linear peptides containing only normal peptide links
- C07K7/08—Linear peptides containing only normal peptide links having 12 to 20 amino acids
-
- Y—GENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10—TECHNICAL SUBJECTS COVERED BY FORMER USPC
- Y10S—TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10S707/00—Data processing: database and file management or data structures
- Y10S707/99941—Database schema or data structure
- Y10S707/99943—Generating database or data structure, e.g. via user interface
Landscapes
- Chemical & Material Sciences (AREA)
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Molecular Biology (AREA)
- Organic Chemistry (AREA)
- Biochemistry (AREA)
- General Health & Medical Sciences (AREA)
- Medicinal Chemistry (AREA)
- Engineering & Computer Science (AREA)
- Biophysics (AREA)
- Genetics & Genomics (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Urology & Nephrology (AREA)
- Biomedical Technology (AREA)
- Gastroenterology & Hepatology (AREA)
- Immunology (AREA)
- Hematology (AREA)
- Microbiology (AREA)
- Physics & Mathematics (AREA)
- Biotechnology (AREA)
- Cell Biology (AREA)
- Endocrinology (AREA)
- General Chemical & Material Sciences (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Toxicology (AREA)
- Food Science & Technology (AREA)
- Zoology (AREA)
- Analytical Chemistry (AREA)
- General Physics & Mathematics (AREA)
- Pathology (AREA)
- Peptides Or Proteins (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
- Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)
- Investigating Or Analysing Biological Materials (AREA)
- Organic Low-Molecular-Weight Compounds And Preparation Thereof (AREA)
Abstract
本发明特征性地描述了用于鉴定将结合到EPO受体上并用作红细胞生成素(EPO)模拟物的分子的计算机-辅助方法(100,102,104,106,200,202,204)。用本发明方法鉴定出的优选的EPO模拟物在一种或多种体外或体内EPO活性的生物测定中用作EPO受体的激动剂。
Description
发明背景
1.发明领域
本发明涉及用于鉴定和设计红细胞生成素小分子模拟物的计算机辅助方法。
2.相关领域的描述
红细胞生成素(EPO)是未成熟红细胞增殖和分化的主要调节因素。EPO是胎儿的肝脏和成人的肾脏中缺氧(血液或组织中的低氧水平)反应的产物。其在血流中循环,并在血流中靶向位于骨髓和其它造血组织中相关远祖细胞上的EPO受体(EPOR)。重组人红细胞生成素(rHuEPO)广泛用于治疗由于慢性肾病、癌症化疗和ATZ治疗而导致的贫血病人。
EPO受体属于细胞因子大家族,后者还包括其它造血生长因子(如白细胞介素、集落刺激因子(CSFs)以及生长激素催乳素和睫状神经营养因子(CNTF))的受体。该受体家族的结构组件由三个元件所组成:结合胞外结构域的配体、短的跨膜结构域和大的胞质结构域。已经提出该大家族的胞外结构域包括2个分离的结构域,每个结构域约含有100个残基,这些残基折叠成由7个反向平行的β-链所组成且具有稳定的Ig域拓扑结构的夹心结构(sandwich)。该家族的成员在其胞外结构域中具有2个共同的特征性基元:在N-末端区域中有一对保守的二硫桥,和在C-末端区域有一个WSXWS盒子(其中的X为任何的氨基酸残基)。对于该受体大家族的大多数成员来说,一条或多条多肽链的寡聚化对于形成高亲和性受体复合物是至关重要的。已证实均二聚体复合物为hGHR的活性形式,并且表明G-CSF、催乳素和EPO受体有类似的模式。
红细胞生成素诱导2个EPO受体分子的二聚化,从而通过与2个酪氨酸激酶(JAK2)分子的结合而导致随后的胞质结构域的磷酸化从而起动导致相关生物学事件的级联爆发。
考虑到红细胞生成素的重要性,能够鉴定出能结合EPO受体并诱发出一般由EPO诱导的反应的分子将是十分理想的。
发明概要
本发明特征性描述了用于鉴定将结合到EPO受体上并用作EPO模拟物的分子的方法。用本发明方法鉴定出来的优选的EPO模拟物在一种或多种体外或体内的EPO活性的生物分析中用作EPO受体的激动剂。优选的模拟物为缺乏肽键的分子,即非肽的模拟物。优选的肽模拟物具有15个或更少,更优选具有10个或更少的氨基酸。
本发明的方法包括具有特定结构的分子的鉴定和设计。该方法依赖于对来自对EPO受体胞外结构域(氨基酸1至225)的X-射线晶体学研究的准确结构信息的使用,该EPO受体与作为EPO模拟物的肽EMP1(下述的EPO模拟肽1)形成复合物。该晶体学数据使你能够鉴定出肽模拟物中对EPO受体结合和二聚化重要的原子。更为重要的是,该数据定义了这些重要的接触原子的三维排列。那些包括一种其中含有与一些或所有这些接触原子具有类似三维排列的原子的区段的其它分子很可能能够用作EPO模拟物。此外,人们可用此结构信息来设计或鉴定出甚至比这里所述的肽模拟物具有更高EPO活性的分子。
下面附图和描述详细列出本发明的优选实施方案。一旦已知本发明的细节,众多的其它革新和改变对于本领域的熟练技术人员来说将是显而易见的。
附图简述
图1为表示用计算机系统鉴定红细胞生成素的潜在模拟物的第一种方法的流程图。
图2为表示用计算机系统鉴定红细胞生成素的潜在模拟物的第二种方法的流程图。
在各图中同样的参数和名称代表相同的元件。
本发明的详细描述
在本描述中,列出的优选实施方案和实施例应当被看成是例证而不是对本发明的限制。
下面描述的是结合到EPO受体胞外结构域的EPO小肽模拟物的晶体结构。肽EMP1(GGTYSCHFGPLTWVCKPQGG;SEQ ID NO:1)特征在于分子内的二硫桥。多条证据表明EMP1可用作EPO的模拟物。例如,在受体结合测定中,EMP1与EPO竞争并诱导被加工成响应EPO的细胞系的细胞增殖。EPO和肽均诱导与EPO响应细胞中相似的磷酸化级联事件和细胞的周期性进程。此外,通过对新生血红细胞生产进行的2种不同的体内测定而监测到的结果表明,EMP1在小鼠中显示出显著的造血效应。这些数据综合起来有力地支持了这样的观点,即具有与EPO序列不相关的序列的多肽配体能够结合到EPO受体上并诱导产生激动剂构象或EPO受体的装配。小分子模拟物的设计
EMP1二聚体的结构显示基本上小于天然激素的分子可用作激动剂并诱导适当的生物学反应。据认为该多肽与其天然的激素相比,与受体的接触界面实质上更小。在EPO受体中此结合决定簇形成几乎水平的基本上疏水性的表面,没有任何能有助于设计与该受体相互作用的小分子配体的孔洞(carities)或带电残基。
由这里给出的结构数据所揭示的该简化的相互作用框架可用于鉴定其它的EPO模拟物。对结合到EPO受体并形成二聚化EPO受体重要的EMP1原子包括涉及EMP1(肽)与EBP(EPO受体)之间接触的原子和涉及二聚体复合物中2个EMP1分子之间接触(肽肽接触)的原子。除了表2中列出的接触外,下面的EMP1-EMP1疏水接触是明显的:每条肽中的Tyrp4,Cysp6,Phep8,Trpp13和Cysp15。下面的EMP1-EBP疏水相互作用也是明显的:在每个肽中的Tyrp4,Phep8和Trpp13。本领域的熟练技术人员将会理解不是所有处于于显著接触残基中的原子都需要存在于模拟物中。实际上,很可能只有那些真正与EPO受体形成重要接触的少数原子对模拟物活性起重要的作用。本领域的技术人员将能够根据用这里的结构数据可构建的二聚体EMP1-EPO复合物的模型鉴定出这些重要的原子。
优选的模拟物将包含与EMP1中的、与EPO受体原子接触的位置类似的原子。更为优选的模拟物将在结构上类似于在下述结构中发现的EMP1二聚体。这是因为EMP1的二聚化是EPO受体二聚化中的一个重要的因素。
本发明方法使用了基于计算机的用于鉴定具有所需结构的化合物的方法。更具体地,当肽与包含人EPO受体氨基酸1至225的红细胞生成素受体部分共结晶时,本发明使用了肽GGTYSCHFGPLTWVCKPQGG中一小组原子的三维坐标,通过计算机方法确定肽和非肽模拟物的候选品。
这些基于计算机的方法分成两大类:数据库方法和从头设计方法(denovo design methods)。在数据库方法中将目的化合物与化学结构数据库中存在的所有化合物作比较且鉴定出那些结构在一定程度上类似于目的化合物的化合物。数据库中的结构要么是基于NMR或X-射线晶体学产生的实验数据要么根据二维(即序列)数据模拟的三维结构而产生的实验数据。在从头设计方法中,其结构在一定程度上类似于目的化合物的化合物模型是通过使用已知的结构信息(如由X-射线晶体学和/或理论原则所产生的数据)用计算机程序产生的。这种设计方法可以以原子-原子(atom-by-atom)方式或通过装配贮存的小分子片段而构建具有所需结构的化合物。
数据库和从头方法在鉴定与目的化合物具有类似活性的化合物中的成功依赖于对目的化合物中与功能相关的部分的鉴定。对于药物,与功能相关的部分称为药效基团。那么药效基团即为对生物活性(如EPO活性)重要的结构特征和官能团的排列。
并非所有的鉴定出的具有所需药效基团的化合物都能用作EPO的模拟物。实际的活性最终仅可通过在相关的生物测定中测定该化合物的活性而加以测定。然而,本发明方法是极其有用的,因为使用它们可大大降低要鉴定出实际的模拟物而必需测试的化合物的数目。
EPO受体的二聚化对于活性是重要的。因此,当模拟物与EPO受体二聚体结合时,优选的模拟物将基于EMP1二聚体的结构。因此,优选的模拟物包括存在于下述结构中的两种RWJ61233肽的重要接触。这种模拟物将有利于EPO受体的二聚化。
适用于从二维数据产生预期的三维结构的程序包括:Concord(TriposAssociated,St.Louis,MO),3-D Builder(化学设计公司(Chemical Design Ltd.),Oxford,英国),Catalyst(Bio-CAD Corp.,Mountain View,CA),和Daylight(Abbott Laboratories,Abott Park,IL)。
适用于检索三维数据库以鉴定出具有所需药效基团的分子的程序包括:MACCS-3D和ISIS/3D(分子设计公司,San Leandro,CA),ChemDBS-3D(化学设计公司,Oxford,英国)和Sybyl/3DB Unity(Tripos Associate,St.Louis,MO)。
适于药效基团筛选和设计的程序包括:DISCO(Abbott Laboratories,Abbott Park,IL),Catalyst(Bro-CAD Corp.,Mountain View,CA),和ChemDBS-3D(化学设计公司,Oxford,英国)。
化学结构的数据库从剑桥晶体学数据中心(剑桥,英国)和ChemicalAbstracts Service(Columbus,OH)得到。
从头设计程序包括Ludi(生物系统技术公司,San Drego,CA)和Aladdin(白天化学信息系统,Irrine CA)。
本领域的技术人员将认识到模拟物的设计可能需要对用本发明方法设计或鉴定出的化学结构作少量的结构改变或调整。
总之,用本发明方法鉴定或设计出的化学化合物可化学合成且然后用下述的任何一种方法测试其EPO活性。本发明方法特别有用,因为使用它们可大大降低进行EPO活性试验而必需筛选的潜在模拟物的数目。
本发明可用硬件或软件或二者联合共同完成。然而,优选地,本发明可用在可编程计算机中执行的计算机程序加以完成,其中的每台计算机包括处理器、数据存贮系统(包括易失(volatile)和不易失内存和/或存贮元件)、至少一件输入装置和至少一件输出装置。程序编码(code)用于输入数据以完成上述的功能并产生输出信息。输出信息以已知的方式应用于一件或多件输出装置。例如,该计算机可以是个人计算机、微型计算机或常规设计的工作站。
每个程序优选使用高级程序编程语言或专门目的编程语言完成以与计算机系统交流。然而,如果必要,此程序可用汇编语言或机器语言完成。在任何场合,该语言可以是已经编译过的语言。
每个这样的程序优选贮存于可被一般或特定目的可编程计算机解读的存贮介质或装置(如,ROM或磁盘)上,用于当由计算机解读存贮介质或装置以完成这里所述的方法时设置和运行该计算机。也可考虑把设置了计算机程序的本发明的系统用作计算机的可读存贮介质,这样设置存贮介质使得计算机以特定和预定的方式运行以完成这里所述的功能。
图1为表示用计算机系统鉴定红细胞生成素的潜在模拟物的第一种方法的流程图。该方法使用了已编程的计算机,后者包括处理器、数据存贮系统、至少一件输入装置和至少一件输出装置,并且包括以下的步骤:
(1)经输入装置将数据输入已编程的计算机,其中的数据包括当肽与包括受体氨基酸1到225的红细胞生成素受体的一部分共结晶时该肽GGTYSCHFGPLTWVCKPQGG中一小组原子的三维坐标,从而产生一套标准数据组(criteria data set)(STEP 100);
(2)用此处理器,将该标准数据组与贮存于计算机数据存贮系统中的化学结构计算机数据库进行比较(STEP 102);
(3)用适于检索三维数据库的程序从数据库中筛选以鉴定出具有所需药效基团(如上述的基团或等价物)的分子、具有与标准数据组结构相似的部分的化学结构(STEP 104);
(4)将筛选出的具有与标准数据组结构相似的部分的化学结构输出到输出装置(STEP 106)。
图2为显示用计算机系统鉴定红细胞生成素潜在模拟物的第二种方法的流程图。该方法使用已编程的计算机,包括处理器、数据存贮系统、至少一件输出装置和至少一件输出装置,并且包括以下步骤:
(1)经输入装置将数据输入程序化的计算机,其中的数据包括当肽与包含受体氨基酸1至225的红细胞生成素受体的部分共结晶时,肽GGTYSCHFGPLTWVCKPQGG中一小组原子的三维坐标,从而产生一套标准数据组(STEP 200);
(2)用适于产生化学结构模型(如上述模型或等价物)的程序构建具有与标准数据组结构相似的部分的化学结构模型(STEP 202);
(3)将构建出的模型输出到输出装置(STEP 204)。生物活性的证实
为了测定用本发明方法鉴定出的分子是否能够用作EPO模拟物,应进行一次或多次EPO活性的体外或体内分析。例如,模拟的分子应该能够刺激TF-1细胞的增殖(Kitamura等,细胞生理学杂志140:323,1985)或B6Sut细胞的增殖(Greenberger等,美国自然科学院院报80:2931,1983),但优选不刺激不含有EPO受体的细胞的增殖。因此,优选的模拟物不应当刺激Mo7e细胞的增殖(Avanzi等.,Br.J.Haematol.69:359,1988)。
潜在的模拟物也可在鼠的红细胞生成素模型中加以测定。在此分析中,将潜在的模拟物施用至表达基准水平的内源性EPO的正常小鼠中,计数网状红细胞(优选通过流式细胞仪)以测定是否该候选模拟物增加网织红细胞水平。网织红细胞水平的增加表明此候选模拟物刺激红细胞生成。因为该分析中使用的小鼠已经表达了EPO,故此分析可能是相对不敏感的。或者,候选模拟物可在极低氧的-红细胞多(exhypoxic-polycythemic)的小鼠生物分析中加以测定。在此测定中,红通过将小鼠置于低压舱中而诱导细胞增多从而降低内源性的EPO水平。可以潜在的EPO模拟物向这样处理过的小鼠给药。向血液中掺入59Fe,用作红细胞生成的尺度。此红细胞生成可归因于该候选模拟物。
上述的分析为合适分析的实例。也可使用本领域的技术人员已知的用于测定EPO活性的其它分析方法。
为了测定候选模拟物的生物学活性,优选测定几种浓度的候选模拟物的生物学活性。给定浓度的候选模拟物的活性可与EPO本身的活性作比较。结构数据
结合到肽EMP1的人EPO受体的氨基酸1至225的坐标以标准Brookhaven数据库的形式列于附录中。此附录中也列出了范德华氏相互作用也包括进。这些坐标可用于本发明方法EPO中的模拟物的设计和鉴定。EBP-EMP1复合物的结构
将由残基1-225所组成的人EPO受体胞外片段(EPO结合蛋白,EBP)在大肠杆菌中表达并按所述(Johnson等.,蛋白表达纯化7:104,1996)进行纯化。在正交晶空间群P212121获得了EBP与EMP1的复合物的偏长菱形结晶,其中的细胞参数a=59.2埃,b=75-5埃,c=132.2埃,在不对称单位中具有2个EBP和2个肽分子且Vm=2.8埃31道尔顿(Matthews,分子生物学杂志.33:491,1968)。通过使用2种重原子衍生物进行多重同晶形替代(multiple isomorphous replacement)(MIR)来测定晶体结构(表1)。每条肽的残基1-2和19-20以及受体分子I的残基1-9、21-23、164-166、221-225及受体分子II的残基1-9、21-23、133-135、221-225具有较低的电子密度或不具有电子密度,因而被排除在结构分析之外。
在影响结构解释的电子密度的重要间断发生于两个受体分子D1中连接氨基末端α-螺旋与第一条β-链的三个残基(Arg21-Ctly22-Pro23)上。分子堆积图显示晶体中第二种非晶体学相关二聚体的附近存在着这种电子密度的重要变化,这给这三个残基的连接方式提供了2种可能性。目前对连接子连接方式的选择基于另一种独立的EBP-肽复合物的更高分辨率(2.5A)的结构,该结构具有类似的分子堆积,但其中的这三个残基的电子密度是清晰的。目前还没有实验数据以证实是否该N-末端α-螺旋存在于溶液中或是结晶堆积的人工产物。显然,在发表的hGHbp(起始于残基32;deVos等.,科学255:306,1992),PRLR(起始于残基2,在第一条β-链的残基6之前没有任何定义的二级结构;Somers等.,自然372;478,1994),INF-yRα(起始于残基17;Walter等.,自然376:230,1995)或组织因子(起始于残基3,在第一条β-链的残基11之前没有任何定义的二级结构;Muller等.,自然370:662,1994)的结构中没有观察到螺旋区。
EBP单体折叠成2个结构域,D1和D2,与每个结构域的长轴形成L-形,相互之间形成约90°;整个分子大小为45埃×52埃×62埃。N-末端结构域(D1,残基10-114)和C-末端结构域(D2,残基119-220)之间通过短的4个残基的α-螺旋连接子连接。这2个结构域在整个拓扑结构中与纤连蛋白III-型(FBN-III)结构域的关系比与Ig结构域的关系更为密切(Bork等.,分子生物学杂志.,242:309,1994)。FBN-III折叠由2个反向平行的β-折叠片(β-pleated sheets)所组成,后者由A、B、E链和G、F、C及C′链所组成,并在以下的结构域中发现了它,包括人生长激素(de Vos等.,科学255:306,1992)和催乳素(Somers等.,自然372:478,1994)受体的2个结构域,干扰素-γ受体(IFN-γRα)α链的D1和D2结构域(Walter等.,自然376:230,1995),CD4的D2结构域(Wang等,自然348:411,1990;Ryu等.,自然348:419,1990),组织因子的2个结构域(Muller等.,生物化学33:10864,1994;Harlos等.,自然370:662,1994),韧粘素蛋白(tenacin)的第三个纤连蛋白型重复单元(Leagy等.,科学258:987,1992)和伴侣蛋白质PapD的D2结构域(Holmgren等.,自然342:248,1989)。FBN-III拓扑结构与Ig恒定区的不同在于D链由一个β-折叠片(A、B、E和D链)变为另一个被定义为C′链的折叠片(G、F、C、C′链)。把EBP的D1和D2结构域的等价β-折叠片核心残基叠加(superposition)导致77Cα2.3A的均方根偏差,该值显著大于hGHbp(1.1A)和PRLR(0.8A)的相应结构域的叠加,这反映了2个EBP结构域之间折叠亚结构的差异。
在D1中,短的α-螺旋(残基10-20)位于第一个β-夹心之前,后者更好描述成FBN-III折叠与Ig折叠(残基24-114)之间的杂合而不是严格的FBN-III拓扑结构。在这种h-型折叠(Wang等.,自然348:411,1990;Ryu等.,自然348:419,1990)中,C′链较长并且首先与C链相互作用且然后转而与E链相互作用(其中的C′将其命名改变为D链)形成4-4链的β-夹心。D1含有2个连接Cys28(βA)与Cys38(βB)和Cys67(βC′)与Cys83(βE)保守的二硫桥。形成2个二硫桥的半胱氨酸对之间的残基数目对于EBP来说为9和15,而对于GHR和PRLR来说则均为9和10。C′和E键之间更长的连接是使C′链的另一半变成D链。在两个S-型GHR结构域中都没有发现这种h-型拓扑结构。潜在的糖基化位点残基存在于Asn52上,该残基位于靠近连接βB和βC链的环形区域的末端。虽然Asn52在该细菌表达的蛋白质中没有被糖基化,但Asn52侧链周围的外部孔洞(carity)可容易地容纳碳水化合物部分。
螺旋连接子(残基115-118)连接D1和D2(结构域之间的螺旋连接子Ile115、Asn116、G1u117和Val118的φ、φ转角分别为-50,°-27°,-76°,-21°,-99°,26°,和-151°,38°)已经在该受体家族的其它成员、hGHbp、PRLR、IFN-rRa和组织因子中被发现。在EBP中,结构域的结合进一步受到D1的11个残基和D2的12个残基之间氢键、疏水相互作用和一个盐桥(Arg32和Asp122之间)混合作用的限制,2个结构域的总的包埋表面为950A2[因相互作用而包埋的分子表面积用程序MS(Connolly,应用晶体学杂志,16:439,1983)]用1.7埃探针球(probe sphere)和标准的原子半径(如Davies,等,在生化年鉴59:439,1990中所述)来计算。由于使用了不同的算法(connolly和Lee等.,分子(生物学杂志.,55:379,1971)和探针半径,彼此(de Vos等.,科学255:306,1992)发表的值之间存在一些差异。为了清晰起见,为了在不同受体之间进行更好更好地比较,这里报导的所有值都以相同的方式计算了。
D2(残基119-220)折叠成标准的具有一个自由的半胱氨酸但不具有二硫桥的FBN-III(S-型)拓扑结构,这与在D1中分别具有3个和2个二硫桥而在D2中没有二硫桥的GHR和PRLR相一致。α-螺旋连接子之后,D2以含有Pro124的无规卷曲(残基118-126)开始,并且根据大多数1-类和2-类细胞因子受体中的序列比较(Bazan,美国自然科学院院报87:6934,1990),该无规卷曲在hGHbp、PRLR、组织因子和IFNγ-Rα的结构中是保守的,此短的卷曲以Gly124结束,后者具有与hGHbp(φ,
≈63°,68°)和PRLR(φ,
≈58°,38°)中等价的Ala136和Ala101转角相一致的正φ(φ, ≈52°,40°)。Pro124区域形成与含有WSXWS单元的相应凸起相邻且平行的类似的拉长的凸起构象。WSAWS序列形成一个加宽的β-凸起(Richardson,Adv.Prot.Chem.34:167,1981)并且位于一般与EPOR的跨膜区连接的βG链的紧前面的拉长的链区域。
该复合物的四级结构由两条肽和两个受体所组成,该两条肽和两个受体而形成T-形的组装结构。非共价的肽二聚体与2个受体分子相互作用,产生几乎完美整的2-重对称排列。在二聚体中插入D2的2个EBP分子后,2个D1结构域的质心仅相隔0.8埃,足以扰乱完美的2-重对称。在二聚体中分别单独迭加每个受体相应的D1和D2,导致0.53埃(105D1Cα对)和0.47埃(93D2Cα对)的均方根偏差。
环形的EMP1在Cysp6和CysP15之间含有一个连接2条短的β-链(残基4-7和13-16)的二硫桥,这两条链通过由残基Glyp9-Prop10-Leup11-Thrp12所组成的略微扭曲的1β型回折连接[该β-回折的Prop10(i+1)和Leup11(i+2)的φ,
 分别为-62°,-38°和-99°,-60°。Leup11的羰基氧原子与EBP之间有氢键,使
值偏离其标准的1型β-回折的正常的0°±30°(i+2)值]。每条肽与其它的肽伴侣紧密结合并将其1220A2分子表面积的320A埋藏于这种相互作用中(Connelly,应用晶体学杂志.16:439,1983;Davies等.,生化年鉴.59:439,1990;Richards,分子生物学杂志.55:379,1971)。2条肽的主链(mainchains)之间的4个氢键导致4条反向平行β-折叠片的形成(表2)。2个对称的疏水核心通过肽二聚化而装配成并由二硫桥和Tyrp4、Phep8和Trpp13的侧链组成。每个疏水核心的结构与在角落里放置Phep8、Trpp13和Tyrp4(来自另一条肽)的芳香环和二硫桥(Cysp6-Cyp15)的盒子相似。位于肽两个末端的2个甘氨酸残基没有参加构建。
此肽二聚体包埋于2个EBP受体分子之间的深缝中。每条肽的一部分单体与2个受体分子相互作用。由于与肽二聚体结合时的2-重对称相互作用,每个EBP的结合位点实际上是相同的。EBP上四个主要的接触区来自连接D1的A链与B链(L1残基33-34)和F链与G链(L6残基90-94)以及D2的B链与C链和F链与G链(L6残基203-205)的四个环形区域(L1、L3、L5、L6)的片段。对于2条肽和EBP来说,在肽-EBP组装结构中,分子的总包埋表面积分别为840A2和880A2。肽-EBP相互作用可分成截然不同的疏水区(67%)和极性区。在肽和受体之间形成疏水核心并且包括来自一个EBP分子的Phe93、Met150和Phe205及由一条肽的Phep8和Trpp13与另一条肽的Tyrp4和Cysp15所组成的肽疏水盒。极性相互作用主要位于结合缝的底部并且在D2中主要有L5环。6个氢键中的5个来自一条肽的β-回折的残基Glyp9、Prop10和Leup11与横跨其另一条肽伴侣而与L3环相互作用的保守Tyrp4的主链和侧链羟基之间的作用(表2)。EBP-EBP相互作用对复合物的整体稳定性具有惊人的次要贡献,其中由每个受体分子的Leu175和Arg178所造成的受体间包埋的分子表面积仅为75平方埃。
EMP1是含有除了半胱氨酸外数个保守残基序列家族的成员之一。在结构上最为重要的这些连续残基似乎为Tyrp4和Trpp13,它们与二硫桥一起对肽-肽相互作用的疏水核心起主要作用。此外,这两个芳香残基在肽-受体间相互作用和受体二聚化中起到关键作用。溶液中EBP的二聚化
为了探索EMP1与EBP在溶液中的相互作用,我们使用了双官能团的sulphydryl反应交联物DPDPB,[1,4-二-(2′-吡啶二硫丙酰胺基)丁烷],以稳定肽依赖性的二聚体结构。交联物的选择基于胺反应性交联剂试验的发现,该交联剂能使失活的EBP失活。EBP在D2中含有单个自由的sulphydryl(Cys181)基,其可能与交联剂之间发生反应(DPDPB交联剂本身没有使EBP的EPO结合能力或EMP1的增殖特性失活)。二聚化的EBP产物是通过EMP1、DPDPB和EBP的共温育而形成的。该二聚化产物的量随着肽浓度的增加而增加并且没有肽时没有观察到显著的二聚体产物。,通过二硫键-交换反应(disulfide-exchange reactions)而形成的DPDPB交联产物应该能容易地通过还原而逆转,如在共价交联的EMP1-介导的二聚体中所见到的一样。此外,我们构建了显示具有增强的生物学活性的共价连接的EMP1二聚体(Johnson等.,在制备中)。EBP二聚体D2中的Cys181残基间距(Sγ-Sγ间距)为20.7A,其约为16A的DPDPB交联物的长度(大约2A的末端键长)。这样,EMP1介导了溶液中与晶体结构相一致的可溶性EBP二聚体复合物的形成。WSXWS单元
相应于WSXWS盒的WSAWS序列(残基209-213)出现于D2中β-链G紧前面的β-凸起中(Richardson,Adv.Prot.Chem.34:167,1981;Chan等.,蛋白质科学,2:1574,1993)。此单元中的残基不与配体相互作用,在受体-受体相互作用中不发挥作用并且位于受体-受体和受体-配体界面的相反一侧。WSAWS盒仅代表相互作用复合物排列的一个片段,其涉及来自D2中四链β-折叠片的其它几个保守的侧链。Trp209和Trp212的吲哚环系统指向β-折叠片的外部凹陷表面并且仅部分暴露于溶剂,而Ala211侧链直接指向溶液。在拟β-折叠型相互作用中Ser210和Ser213的酰胺和羟基与相邻F链的残基198和196的主链之间形成氢链,该相互作用与修饰过的宽β-凸起(Richardson,Adv.Prot.Chem.34:167,1981.,Chen等.,蛋白质科学,2:1574,1993)相似,其中是侧链羟基而不是羰基氧造成了β-折叠相互作用。β-凸起结构将把被4个残基分开的2个Trp残基置于β-折叠片的相同一侧而不是象正常的β-折叠片或伸展的链结构那样置于相反的一侧。凸起中F链的Arg197的胍基和中心残基(Richardson,Adv.Prot.Chem.34:167,1981,Chan等.,蛋白质科学,2:1574,1993)恰好位于2个Trp的吲哚环之间以形成扩展的π-阳离子体系(Kumpf等.,科学261:1708,1993)。Trp209吡咯环的中心,Arg197的Nε及Trp212苯环的中心位于一直线上,其中共轭体系的三个平面以约4A的间隔彼此平行垛叠。此外,Arg199侧链的脂肪族部分与Trp209的吲哚环之间有疏水相互作用,使2个芳香族氨基酸残基和2个带正电氨基酸残基交互垛叠。Glu157的侧链与Arg197形成氢键,该氢键被认为有助于使胍基定向和使系统增加一些特异性和稳定性。
那么似乎通过细胞因子受体的序列比较而鉴定出的线性WSXWS单元仅代表对D2的显著结构特征作出贡献的更为复杂的构象单元的一个组成部分。芳香族残基从前被认为具有稳定效应且在反向平行的β-夹心结构中作为折叠核心而起作用(Finkelstein等.,蛋白质工程.6:367,1993)。精氨酸的胍基和芳香环之间的氨基-芳香基平行垛叠是蛋白质结构中常见的特征(Burley等.,Adv.Prot.Chem.,39:125,1988,Folcoo等.,分子生物学杂志,235:709,1994),但π-阳离子体系的平行三重垛叠是少见的(Kim等.,生物化学32:8465,1993),尽管在其它1-类细胞因子受体,hGHbp和PRLR中观察到了这种结构。
hGHbp(YGEFS)和PRLR(WSAWS)中WSXWS单元的结构等价物涉及更为复杂的π-阳离子相互作用的排列。π-阳离子体系在hGHbp和PRLR中得到延伸,还包括连接D2中的βC和βC′的环形区的其它的芳香残基(hGHbp的Trp186和PRLR的Trp156)和垛叠在Trp与第二个芳香族残基之间的带正电的残基(hGHbp的Arg211和PRLR的Arg147)。其它的Arg残基来自βF链(如hGHbp(Arg211))或βC链(PRLR(Arg147));结合氢并定向精氨酸(orients thearginine)的谷氨酰胺残基也使链分叉。序列比较表明这种Arg-Gln分枝可常见于其它1-类细胞因子受体家族的成员。在hGHbp和PRLR中延伸的π-阳离子体系由以交互顺序垛叠在一起的5个带正电的残基和三个芳香残基组成,其中包括hGHbp中的Lys215、Tyr222、Arg213、Phe225、Arg211、Trp186、Lys179和PRLR中的Lys185、Trp191、Arg183、Trp194、Arg147、Trp156、Lys149。在EBP中,第一个芳香-Arg-芳香三元子约有4A的间距,但第二个体系以约3.6埃间距更为紧密地垛叠在一起,这与π-π相互作用一致(Burley等.,Adv.Prot.Chem.,39:125,1988;Folcco等.,分子生物学杂志.,235:709,1994)。外部的赖氨酸也使用其侧链的脂肪族部分与芳香环形成疏水相互作用。根据与1-类细胞因子受体大家族的其它成员的序列比较,根据结构模拟,这种结构上延伸的π-阳离子系统可存在于人血小板生成素、IL-6和睫状神经营养因子受体和人IL-4受体中(Gustchina等.,蛋白质21:140,1995)。虽然IFN-γRα和组织因子不具有WSXWS基序,但IFN-γRα的相应序列TTEKS(残基213-217)(Wacter等,自然376:230,1995)和组织因子的相应序列KSTDS(残基201-205)(Muller等.,生物化学33:10864,1994;Harlos等.,自然370:662,1994),维持了很类似的β-凸起。这5个X-射线结构中的保守序列表明位置2和5的丝氨酸或苏氨酸在其侧链羟基与相邻链的主链之间维持有一套常规的氢键。只有在hGHbp中,在2位置没有含羟基的残基,但Ser226仍然维持等价的相互作用。Ser226突变为Ala终止了hGHR与hGH的结合,并且它在细胞表面的表达也剧烈地下降了(Baumgartner等.,生物化学杂志.,269:29094,1994)。在GM-CSFRα和IL-2Rβ中,丝氨酸残基的点突变导致在细胞表面的表达发生实质性的降低但对配体结合影响很小或没有影响(Ronco等.,生物化学杂志.269:277,1994;Miyazaki等.,EMBO杂志10:3191,1991)。
已经提出在EPOR中WSXWS单元或其在1类细胞因子受体的其它成员中等价物的保守性对于生物活性是必须的,因此被认为是受体结合位点的一部分(Yoshimura等.,生物化学杂志.267:11619,1992;Quelle,分子细胞生物学.12:4553 1992)。对于EPOR,对WSAWS序列的100个突变的系统研究证实2个色氨酸和丝氨酸的大多数突变导致产生了不能到达细胞表面但仍保留于内质网中的分子(Hilton等,美国自然科学院院报92:190,1995;Hilton等.,生物化学杂志.271:4699,1996)。此外,与野生型相比,在WSAWS序列中的Ala211突变为Glu导致了从ER向高尔基体更好的转用以及细胞表面上EPOR分子数目3-5倍的增加(Hilton等.,美国自然科学院院报92:190,1995;Hilton等.,生物化学杂志.271:4699,1996)。这些结果支持了我们的结论,即WSXWS序列在EPOR和其它相关的受体的D2结构和折叠中起到重要作用。与其它细胞因子受体复合物结构的比较
肽-EBP复合物的总的四级结构基本上形成hGH-hGHR复合物中等价的排列。生长激素配体的单一四螺旋-束结构的不对称性质导致了受体的不对称的均二聚化,其相应于受体间159°的转角,而EBP-肽复合物则几乎为完美的2-重(180°)旋转轴。EBP和hGHbp中结构域的四级排列也有些不同。当等价的EBP与hGHbpD2结构域相互叠加时,其相应的D1结构域相差12°转角并有4.3埃的平移。
hGH与其受体的结合机制已被深入研究过(Wells,当前细胞生物学意见6:163,1994;Clackson等.,科学267:383,1995)并且是有成果的。最初激素与一个受体的高亲和力结合(nM)导致在受体上产生1130平方埃的包埋表面积。第二个hGHbp2与hGH上的第二个结合位点之间实际上具有更小的界面(deVos等.,科学255:306,1992)并且仅与预先形成的1∶1复合物发生相互作用,与hGH产生740平方埃的包埋表面积,与第一个hGHbp1形成440平方埃的包埋表面积(de Vos等.,科学255:306,1992;Wells,当前细胞生物学意见.6:163,1994;Clackson等.,科学267:383,1995)。每个hGHbp的结合决定簇由6个识别环(L1-L6)所组成,其中的3个(L1-L3)来自D1中β-夹心结构的一个末端,一个来自结构域之间的连接子,2个来自D2。
虽然这两种受体复合物EBP-EMP1和hGH-hGHbp具有不同的二聚体排列,这个情况可能代表天然的与合成的配体在大小和形态方面存在差异。2种受体共同具有等价的配体识别环,对于EBP来说,该识别环为L1、L3、L5和L6和对于hGHbp来说,该识别环为L1到L6。仅与一个分子的hGH形成复合物的非活性PRLR也使用相同的接触环(L1至L6)(Somers等.,自然372:478,1994)。根据hGHbp和PRLR中配体识别位点的相似性,人们将预期当EBP的天然EPO配体已经被结合时,结合位点将延伸而包括另外两个环即包含从C链到C′链的残基59-63(L2)和D1βG羰基端的残基110-118(L4)及结构域之间的连接子的L2和L4。EBP、hGHbp和PRLR区域内的这6个环位于结构上等价的位置,虽然每个环的相互作用部分(侧面或尖端)仍然类似,但在大小、氨基酸组成和构象上都有所不同,;L1、L2、L3、L5主要与其尖端相互作用而L6与其侧面相互作用。在EBP中,L5环比hGHbp和PRLR中的短三个残基,而其中的L6环分别比hGHbp和PRLR中的长3个和4个残基。在这三个受体中,L2环不同(6到10个残基)但是在EBP中L2环不参与肽结合,而在hGHbp中L2环是部分错乱的,尽管它没有与激素接触。一方面,这种情况类似于抗体中的互补性决定区(CDR′S),其中的6个结合环长度和序列的改变赋予了不同抗原的特异性,而其骨架本身保持稳定(Wilson等.,Ciba Foundation Symposium Wiley,Chichester,1991,Vol.159,p.13)。
已显示对于hGH-hGHbp复合物,仅仅是构成受体的结构性抗原决定部位的33个相互作用的残基中的一小组9个残基构成功能性的抗原决定部位或热点(hot spot)(Wells,当今细胞生物学意见6:163,1994;Clackson等.,科学267:383,1995),在这里发生高亲和力的结合相互作用。这种减少的抗原决定部位实质上比结构性的抗原决定部位更小并且包括位于接触环L1、L3和L5中的残基(Arg43、Glu44、Ile103、Trp104、Ile105、Pro106、Asp165、和Trp169),其中最重要的贡献(contribution)(74.5kcal/mol)来自L3和L5中的2个芳香残基(Trp104和Trp169)(Wells,当今细胞生物学意见,6:163,1994;Clackson等.,科学267:383,1995;Wells,美国自然科学院院报93:1,1996)。正如前面所暗示的,在EBP中,Phe93相当于hGPbp中的Trp104(Wells,当前细胞生物学意见.6:163,1994;Clackson等.,科学267:383,1995.,Wells,美国自然科学院院报93:1,1996;Jolliffe等.,Nephrol.Dial.Trans.10:suppl.2,28,1995),但没有与较短的L5环中的Trp169类似的残基。在EBP-EMP1复合物中,Phep8肽芳香侧链占据了与hGHbp中Trp169侧链等效的位置。人们可认为当EPO与其受体结合时,此激素可向结合界面的疏水核心提供芳香残基并且/或者EBP中的L6环在激素结合中起到比在hGHbp中可更为重要的作用,因为它多3个残基并且含有芳香的Phe205。
在这三种1-类受体结构中,有些环被打乱,它们是EBP的D2中的环(EBP1中的残基164-166及EBP2中的133-135)和hGHbp(hGHbp1的残基55-58,73-78和hGHbp2的54-60,73-75)及PRLR(残基31-33,84-86)的D1中的环。否则,这三个1-类细胞因子受体在其整个的四级结构中不会差别很大;在所有三个受体中D1和D2具有广泛类似的一般排列从而这两个结构域长轴之间的夹角约为90度。正是结构域的这种排列才使这些特定的L1-L6环能够被配体识别和结合。在IFN-γ与其2-类受体IFN-γRα之间的2∶2复合物中,D1与D2通过125度的角而相关连,该角度拉长了受体并限制了可用于与激素相互作用的结合决定簇;L1环现变得包埋于D1-D2界面中,尽管其它的5个环(L2-L6)仍可用于配体的相互作用。这种拉长的结构域之间的排列同样也在与细胞因子受体超家族具有较远关系的组织因子中看到(Muller等.,生物化学33:10864,1994;Harlos等.,自然370:662,1994)。
对EBP分子的突变分析表明对结合EPO最为关键的氨基酸残基为L3环中的Phe93(Jolliffe等.,Nephrol.Dial.Trans.10:suppl 2,28,1995)。Phe93Ala突变体的IC50比野生型的增大约1000倍,而其它突变体的IC50(Ser91Ala,Ser92 Ala,Val94 Ala,Met 150Ala和His 153Ala)表现出相对较小的增加,仅2.5-12.5倍)。Phe93的侧链包埋了66A2的分子表面,这在相互作用的侧链中是最高的。在hGHbp中,相应的Trp 104Ala突变导致Kd比野生型的增大2,500多倍,这表明该残基在hGH结合中同样重要而且对功能性性抗原决定部位的疏水核心的提供关键的贡献(Wells,当今细胞生物学意见.6:163,1994;Clackson等.,科学267;383,1995;Bass等.,美国自然科学院院报88:4498,1991)。二聚化对信号传导的作用
在EBP-EMP1复合物结构中,我们惊奇地观察到在序列上而且或许在结构上与天然配体无关的肽可诱导EPO受体发生能促进信号转导和细胞增殖而且具有生物活性的二聚化。对这三个目前已进行过结构测定的1-类细胞因子受体复合物的比较表明,当提出的具有四-螺旋束结构的天然EPO激素(Boissel等.,生物化学杂志.268:15983,1993)诱导受体二聚化时,它更可能类似于hGH-hGHbp的装配。这将提示不止一种制备性细胞外二聚化的模式可用于此细胞质结构域与2个JAK2分子之间的胞内二聚化,从而起动产生生物学相关信号的级联事件(Ihle等.,免疫学研讨会5:375,1993;Klingmuller等.,细胞80:729,1995)。那么,该肽-EBP结构将只代表促进信号转导的一种可能的二聚体排列。
已显示含有单个从Arg到Cys的突变(在人类为Arg130且在在鼠中为Arg129)的突变EPOR分子在没有EPO存在时形成生物活性的二聚体(Yoshimura等.,生物化学杂志.267:11619,1992);Watowich等.,美国自然科学院院报89:2140,1992;Watowich等.,分子细胞生物学.14;3535,1994),这表明细胞外受体均二聚化其本身足以用于信号转导。已显示在另一体系中(Spencer等.,科学262:1019,1993)一套特异的转录因子可通过经过修饰的不含细胞外和跨膜结构域的细胞膜受体的胞质结构域的化学交联而加以诱导激活。这些受体与细胞因子受体超家族无关,但说明寡聚化在受体的激活中起着关键性的作用,并且胞外的结合配体的结构域的主要功能是使能发生(在配体存在时)二聚化或寡聚化并且诱导胞浆结构域的类似结合。
诱变实验最初表明WSXWS单元在这种细胞的信号传导过程中的作用(Yoshimura等.,生物化学杂志.267:11619,1992;Quelle等.,分子细胞生物学.12:4553,1992;Chiba等.,生化生物物理研究通讯.184:485,1992)可能是通过促进受体的同二聚化而完成的。然而,EPOR的截短突变体(Miura等.,Arch.Biochem.Biophys.306:200,1993)没有证实WSXWS单元的这个作用。EBP-EMP1复合物结构显示,对于hGH-hGHbp复合物(deVos等.,科学255:306,1992),EPOR的WSXWS单元位于受体二聚体分子的相反表面。当EPOR、hGHR和PRLR的胞外结构域不存在不配对(unliganded)结构时,测定在涉及WSXWS盒的结合配体上是否发生了构象改变是不可能的。除了D2中显著的结构特征及其与跨膜结构域明显的邻近外,人们还不能够排除此区域与在一定程度上参与细胞转导过程的一些其它细胞表面分子之间可能的相互作用。小分子模拟物的正向设计(Toward design)
EMP1二聚体的结构证明比天然激素小得多的肽可用作激动剂(agonist)并诱导适当的生物学反应。可认为该肽与受体之间形成的接触界面实质上比天然激素与受体之间形成的接触界面更小。该肽在EBP中的结合位点形成了主要为疏水性的几乎扁平的表面,而没有任何孔洞或一般对于小分子配体特异性靶向受体结合位点至关重要的带电残基。hGHbp的研究(Wells等.,科学267:383,1995;Wells,美国自然科学院院报93:1,1996)表明,仅仅观察到的结构性结合位点中的一小部分即所谓的功能性抗原决定部位(见上)贡献了大部分的结合能量并强烈地暗示设计与该位点相互作用的“最小化的”激素可形成足够的相互作用以激活受体。此外,根据对hGH和hGHbp的丙氨酸的扫描,小的激动剂肽与EBP相互作用的有限位点几乎正好对应于更小的功能性抗原决定部位。因此,通过不同的方法,我们得出了类似的结论,即少量的关键相互作用可以在受体上提供功能性抗原决定部位。对此简化的相互作用表面的理解现在可进一步与突变研究结合起来以帮助鉴定出功能性抗原决定部位中最为关键的残基,从而为药物设计提供更为实际的目标。
数据收集、MIR和精确统计
晶体学数据总结于表1中。天然的晶体学数据用安装于Elliott GX-18发电机(generator)上的Siemens多线面积检测器(multiwire area detector)在40kV、55mA和120mm晶体-检测器间距的操作条件下收集。在50kV、80mA和150mm的晶体-摄像板间距的操作条件下,在安装于Siemens发电机上的MAR摄像板上收集到2组衍生数据。用程序XENGEN(Howarrd等,应用晶体学杂志.20:383,1987)对天然数据进行整合、平衡和还原并且用程序DENZO/SCALEPACK(Otwinowski等.,SERC Darsbury实验室,Warrington,1993)处理衍生数据。初始的多重同晶形替代不规则散射(MIRAS)相(phase)用程序包PHASES计算至3.1埃(Furey,美国晶体学会第40届年会,New Orleans,LA,1990),平均值为0.64(25.0-3.1埃)。用溶剂压平方法(solventflattening protocol)在PHASES中将这些相精确到0.92(25.0-3.1埃)的平均值。图的质量一般较好且大多数复合物结构(94%)可用制图程序0(Jone等.,ActaCrystallogr A47:110,1991)拟合。氨基酸残基的注册(register)根据D1中2个二硫桥的位置加以核实,且乙酸汞衍生物中2个Hg的位置被确认为是与游离Cys181残基结合。该肽的解译从EBP与碘化肽(Tyrp4以p-碘-Phe替代)的复合物得到的另一组数据而加以核实,该复合物的衍射达到3.3埃的分辨率,在Fourier变换之差(Fiodo-Fnat)αMIRAS中清晰地显示出碘原子位置。该结构用慢冷却方法(slow-cooling protocol)在X-PLOR3.1中进行优化(Brunger等.,Acta Crystallogr A46:585,1990;Brunger,X-PLOR,3.1版:X-射线和NMR系统,耶鲁大学出版社,New Haven,CT,1992)并用加权的电子密度图的Fo-Fc,3Fo-2Fc及SIGMAA(Read,Acta Crystallogr.A42:140,1986)进行重建。每2轮优化后,为减少模型偏差,对一套模拟的退火缺省图(7-10%)进行计算并且重建完整的结构。几轮优化后,计算单个的温度因子,且10轮优化和建模后,8.0-2.8埃的数据的R-值为0.21,F>1δ(13,984个反射(reflection))。受体I、受体II和肽的平均热参数分别为10.5A2、12.3A和10.7A。仅有位于D1环形区中的1个非甘氨酸残基[EBP2中的Asn164]位于Ramachandran图中的不允许区域(disallowed region)内。由于结构测定的分辨率(2.8埃)适中,故此模型中没有包括溶剂分子。结合接触
结合接触部分地总结于表2中:EBP-EMP1复合物结合位点中的氢键相互作用。由于该复合物的对称性质,肽-1和肽-2与2个EBP分子之间有等价的相互作用。根据二者的距离(以3.9埃为限)并考虑几何结构,用HBPLUS(McDonald等.,分子生物学杂志.238:777,1994)分析了氢键相互作用。
已经描述了本发明的几种实施方案。然而,应该理解在不偏离本发明精神和范围时可进行各种修饰。因此,应当明白本发明不受这具体描述的实施方案的限制,但仅受所附的权利要求书的限制。all.con Thu 4月25日15:08:07 1996 1
EBP1-肽1VDW 1 LEU 33 CB 4 PHE 308 CE1 1 3.95VDW 1 LEU 33 CB 4 PHE 308 CD1 1 4.11VDW 1 PHE 93 CE1 4 TRP 313 CH2 1 3.74VDW 1 PHE 93 CZ 4 TRP 313 CH2 1 3.98VDW 1 PHE 93 CZ 4 TRP 313 CZ2 1 4.08VDW 1 PRO 149 CA 4 GLY 309 O 1 3.59VDW 1 PRO 149 CB 4 GLY 309 O 1 3.49VDW 1 PRO 149 C 4 GLY 309 O 1 3.66VDW 1 MET 150 N 4 PRO 310 O 1 3.35VDW 1 MET 150 N 4 PRO 310 C 1 3.62VDW 1 MET 150 CA 4 LEU 311 O 1 3.41VDW 1 MET 150 CA 4 GLY 309 O 1 3.78VDW 1 MET 150 CA 4 LEU 311 C 1 3.87VDW 1 MET 150 CG 4 PHE 308 CD2 1 3.50VDW 1 MET 150 CG 4 PHE 308 CB 1 3.70VDW 1 MET 150 CG 4 PHE 308 CG 1 3.79VDW 1 MET 150 SD 4 PHE 308 CD2 1 3.52VDW 1 MET 150 SD 4 THR 312 C 1 3.55VDW 1 MET 150 SD 4 THR 312 CA 1 3.58VDW 1 MET 150 SD 4 TRP 313 N 1 3.75VDW 1 MET 150 SD 4 PHE 308 CA 1 3.91VDW 1 MET 150 SD 4 PHE 308 CB 1 4.03VDW 1 MET 150 CE 4 PHE 308 CD2 1 3.45VDW 1 MET 150 CE 4 TRP 313 CE2 1 3.71VDW 1 MET 150 CE 4 PHE 308 CE2 1 3.79VDW 1 MET 150 CE 4 TRP 313 CD2 1 3.83VDW 1 MET 150 CE 4 TRP 313 NE1 1 3.91VDW 1 MET 150 CE 4 TRP 313 CZ2 1 4.10VDW 1 MET 150 C 4 LEU 311 O 1 3.41VDW 1 THR 151 N 4 LEU 311 O 1 3.45VDW 1 THR 151 CA 4 PRO 310 O 1 3.82VDW 1 THR 151 CB 4 PRO 310 O 1 3.56VDW 1 THR 151 OG1 4 LEU 311 CD2 1 3.43VDW 1 THR 151 OG1 4 LEU 311 CA 1 3.91VDW 1 THR 151 CG2 4 PRO 310 O 1 3.60VDW 1 SER 152 CB 4 LEU 311 O 1 3.54VDW 1 HIS 153 ND1 4 LEU 311 O 1 3.57SHORTVDW 1 HIS 153 CE1 4 THR 312 OG1 1 2.87VDW 1 HIS 153 CE1 4 THR 312 CB 1 3.48VDW 1 HIS 153 CE1 4 THR 312 CA 1 3.76VDW 1 HIS 153 NE2 4 THR 312 OG1 1 3.57VDW 1 PHE 205 CE2 4 PHE 308 CZ 1 3.90VDW 1 PHE 205 CZ 4 PHE 308 CE2 1 3.40VDW 1 PHE 205 CZ 4 PHE 308 CZ 1 3.53
EBP2-肽1VDW 2 SER 591 CA 4 TYR 304 OH 1 3.44VDW 2 SER 591 CB 4 TYR 304 OH 1 3.88VDW 2 SER 591 CB 4 PRO 317 CB 1 3.95VDW 2 SER 591 OG 4 TYR 304 OH 1 3.44VDW 2 SER 591 OG 4 PRO 317 CB 1 3.61VDW 2 SER 591 OG 4 TYR 304 CZ 1 3.83VDW 2 SER 591 OG 4 TYR 304 CE2 1 3.84VDW 2 SER 591 C 4 TYR 304 OH 1 3.62VDW 2 SER 592 N 4 TYR 304 CE2 1 3.66VDW 2 SER 592 N 4 TYR 304 CZ 1 3.68VDW 2 SER 592 CA 4 TYR 304 OH 1 3.80VDW 2 SER 592 CB 4 TYR 304 OH 1 3.73VDW 2 SER 592 C 4 TYR 304 CE2 1 4.00VDW 2 SER 592 O 4 TYR 304 CE2 1 3.53VDW 2 SER 592 O 4 PRO 317 CD 1 3.59VDW 2 PHE 593 CB 4 CYS 315 O 1 3.74VDW 2 PHE 593 CD1 4 CYS 315 CB 1 3.55VDW 2 PHE 593 CD1 4 TYR 304 CD2 1 3.72all.con Thu 4月25日15:08:07 1996 2VDW 2 PHE 593 CD1 4 TYR 304 CE2 1 3.90VDW 2 PHE 593 CE1 4 CYS 315 CB 1 3.71SHORTVDW 2 VAL 594 CG1 4 PRO 317 CG 1 3.17SHORTVDW 2 VAL 594 CG1 4 PRO 317 CD 1 3.23
EBP1-肽2VDW 1 SER 91 CB 4 PRO 417 CB 1 3.84VDW 1 SER 91 CB 4 PRO 417 CG 1 3.90VDW 1 SER 91 OG 4 PRO 417 CB 1 3.90VDW 1 SER 92 N 4 TYR 404 CE2 1 3.82VDW 1 SER 92 CA 4 TYR 404 OH 1 3.85VDW 1 SER 92 CB 4 TYR 404 OH 1 3.42VDW 1 SER 92 CB 4 TYR 404 CZ 1 4.04VDW 1 SER 92 CB 4 TYR 404 CE2 1 4.09VDW 1 PHE 93 CB 4 CYS 415 O 1 3.43VDW 1 PHE 93 CD1 4 TYR 404 CE2 1 3.71VDW 1 PHE 93 CD1 4 TYR 404 CD2 1 3.83VDW 1 PHE 93 CD1 4 CYS 415 CB 1 3.92VDW 1 PHE 93 CE1 4 CYS 415 CB 1 4.08VDW 1 PHE 93 CE1 4 TYR 404 CE2 1 4.09VDW 1 VAL 94 CG1 4 PRO 417 CG 1 3.54VDW 1 VAL 94 CG1 4 PRO 417 CD 1 3.54VDW 1 VAL 94 CG2 4 PRO 417 CG 1 4.11
EBP2-肽2SHORTVDW 2 LEU 533 CB 4 PHE 408 CE1 1 3.14VDW 2 LEU 533 CB 4 PHE 408 CD1 1 3.77VDW 2 LEU 533 CB 4 PHE 408 CZ 1 4.00VDW 2 LEU 533 CG 4 PHE 408 CE1 1 4.05VDW 2 LEU 533 CD1 4 PHE 408 CE1 1 3.75VDW 2 LEU 533 CD1 4 PHE 408 CZ 1 3.92VDW 2 LEU 533 O 4 PHE 408 CE1 1 3.67VDW 2 PHE 593 CE1 4 TRP 413 CH2 1 3.34VDW 2 PHE 593 CE1 4 TRP 413 CZ2 1 3.41VDW 2 PHE 593 CZ 4 TRP 413 CZ2 1 3.67VDW 2 PHE 593 CZ 4 TRP 413 CH2 1 3.96VDW 2 PRO 649 CA 4 GLY 409 O 1 3.79VDW 2 PRO 649 CB 4 GLY 409 O 1 3.56VDW 2 PEO 649 C 4 PRO 410 O 1 3.72VDW 2 MET 650 CA 4 PRO 410 O 1 3.59VDW 2 MET 650 CA 4 GLY 409 O 1 3.67VDW 2 MET 650 CA 4 LEU 411 O 1 3.77VDW 2 MET 650 CG 4 PHE 408 CD2 1 3.80VDW 2 MET 650 CG 4 PHE 408 CG 1 3.92VDW 2 MET 650 CG 4 PHE 408 CB 1 4.05VDW 2 MET 650 SD 4 TRP 413 N 1 3.72VDW 2 MET 650 SD 4 THR 412 C 1 3.75VDW 2 MET 650 SD 4 PHE 408 CD2 1 3.76VDW 2 MET 650 SD 4 THR 412 CA 1 3.78VDW 2 MET 650 SD 4 PHE 408 CA 1 4.02VDW 2 MET 650 CE 4 TRP 413 CE2 1 3.67VDW 2 MET 650 CE 4 TRP 413 NE1 1 3.76VDW 2 MET 650 CE 4 TRP 413 CD2 1 3.76VDW 2 MET 650 CE 4 PHE 408 CD2 1 3.83VDW 2 MET 650 CE 4 TRP 413 CD1 1 3.88VDW 2 MET 650 CE 4 TRP 413 N 1 3.89VDW 2 MET 650 CE 4 TRP 413 CG 1 3.90VDW 2 MET 650 C 4 LEU 411 O 1 3.54VDW 2 MET 650 C 4 PRO 410 O 1 3.57VDW 2 THR 651 N 4 LEU 411 O 1 3.56VDW 2 THR 651 N 4 PRO 410 C 1 3.77VDW 2 THR 651 CA 4 PRO 410 O 1 3.41SHORTVDW 2 THR 651 CB 4 PRO 410 O 1 3.03VDW 2 THR 651 CB 4 PRO 410 C 1 3.98VDW 2 THR 651 CB 4 LEU 411 CA 1 4.02VDW 2 THR 651 OG1 4 PRO 410 C 1 3.62all.con Thu 4月25日15:08:07 1996 3VDW 2 SER 652 N 4 LEU 411 C 1 3.83VDW 2 SER 652 CA 4 LEU 411 O 1 3.51VDW 2 SER 652 CB 4 LEU 411 O 1 3.18VDW 2 SER 652 CB 4 LEU 411 C 1 4.09VDW 2 SER 652 OG 4 THR 412 CB 1 3.73SHORTVDW 2 HIS 653 CE1 4 THR 412 OG1 1 3.00VDW 2 HIS 653 CE1 4 THR 412 CB 1 3.91
肽1-肽2SHORTVDW 3 THR 303 OG1 4 HIS 407 CB 1 2.94VDW 3 THR 303 OG1 4 HIS 407 CA 1 3.61VDW 3 TYR 304 CB 4 CYS 406 O 1 3.86VDW 3 TYR 304 CD1 4 TRP 413 CZ3 1 3.81VDW 3 TYR 304 CD1 4 TRP 413 CH2 1 3.94VDW 3 TYR 304 O 4 CYS 406 N 1 3.33VDW 3 TYR 304 O 4 CYS 406 O 1 3.47VDW 3 TYR 304 O 4 SER 405 CA 1 3.57VDW 3 SER 305 CA 4 TYR 404 O 1 3.51VDW 3 SER 305 C 4 TYR 404 O 1 3.77VDW 3 CYS 306 O 4 THR 403 CB 1 3.50VDW 3 CYS 306 O 4 TYR 404 CB 1 3.54VDW 3 CYS 306 O 4 TYR 404 CD1 1 3.59VDW 3 CYS 306 O 4 TYR 404 CA 1 3.75VDW 3 CYS 306 CB 4 CYS 406 SG 1 3.81VDW 3 CYS 306 SG 4 CYS 406 SG 1 3.75VDW 3 CYS 306 SG 4 CYS 406 CB 1 4.06VDW 3 PHE 308 CE1 4 TYR 404 OH 1 3.93VDW 3 PHE 308 CE1 4 TYR 404 CE1 1 4.08VDW 3 TRP 313 CG 4 TRP 413 CD1 1 3.85SHORTVDW 3 TRP 313 CD1 4 TRP 413 CD1 1- 3.04VDW 3 TRP 313 CD1 4 TRP 413 NE1 1 3.37VDW 3 TRP 313 CD1 4 TRP 413 CG 1 4.09VDW 3 TRP 313 NE1 4 TRP 413 CD1 1 3.31VDW 3 TRP 313 CZ2 4 CYS 415 SG 1 3.84VDW 3 TRP 313 CH2 4 CYS 415 SG 1 3.83VDW 3 CYS 315 SG 4 TRP 413 CZ2 1 3.59VDW 3 CYS 315 SG 4 TRP 413 CE2 1 3.95VDW 3 CYS 315 SG 4 TRP 413 CH2 1 4.00VDW 3 GLN 318 CD 4 GLN 418 NE2 1 3.28VDW 3 GLN 318 OE1 4 SER 405 CB 1 3.80bref21c.pdb Thu 4月25日12:27:47 1996 1注 红细胞生成素受体(EBP)胞外结构域注 和激动剂EPO模拟物肽1(EMF1)之间的复合物注 …… 注意 …… 残基 21-23(321-323)和164-166,633-636注 具有弱的OR NO电子密度图并被模拟于该结构中,注 这些残基具有90的高B注注 此结构由2个受体(残基10-220,510-720)注 和肽(残基303-318,403-418)分子所组成
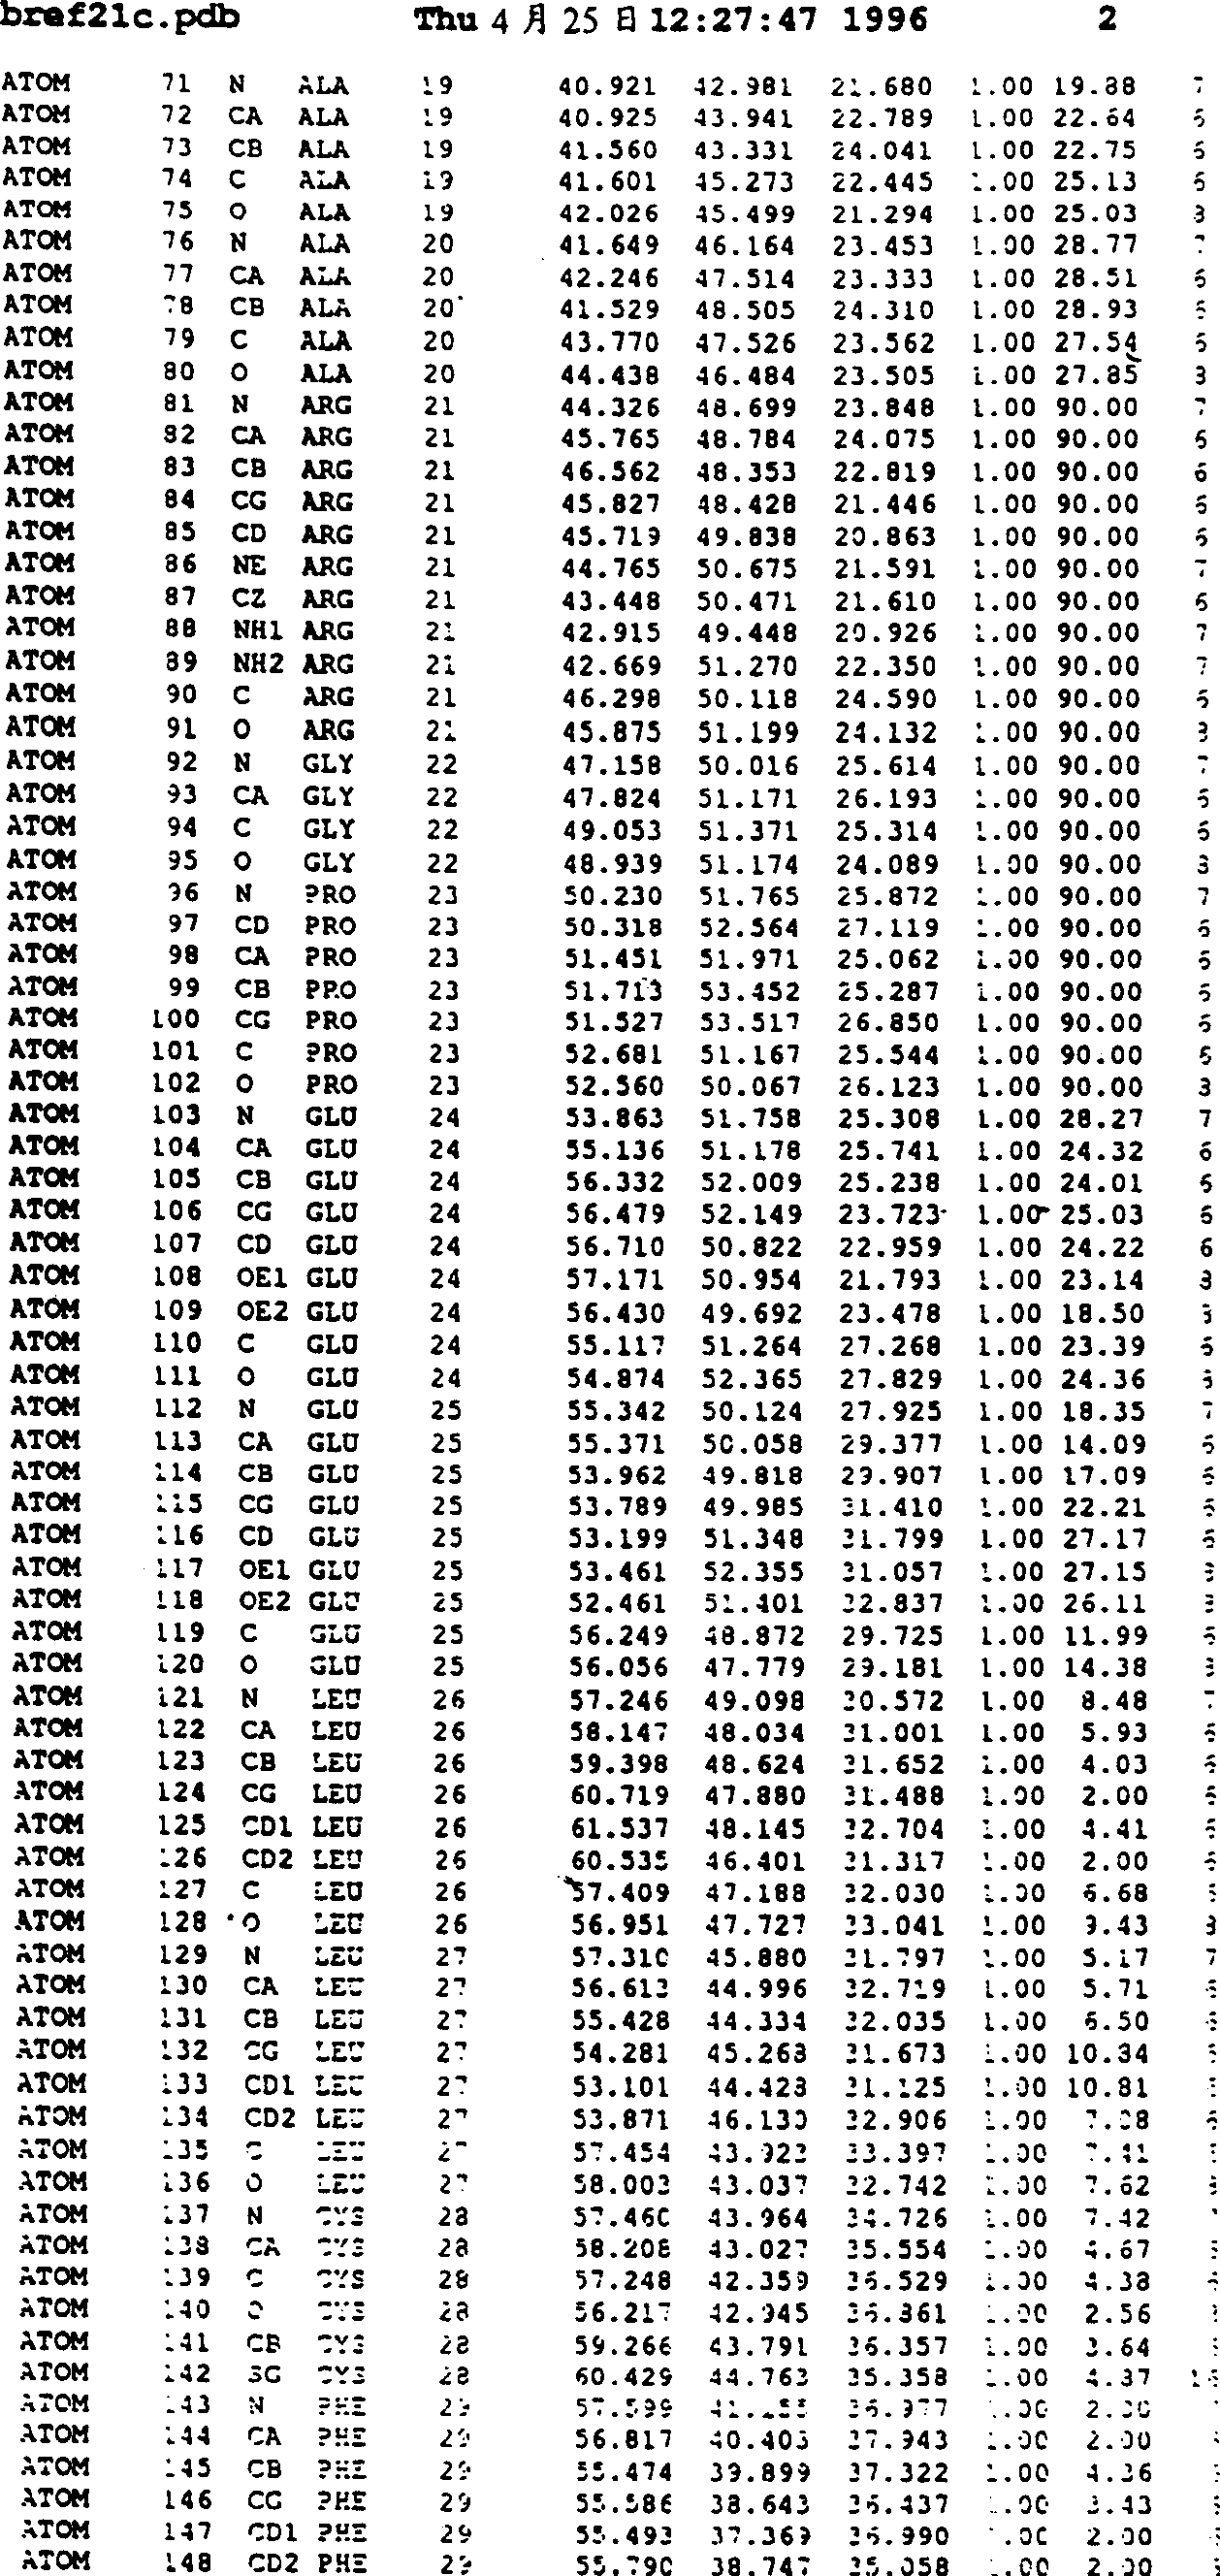
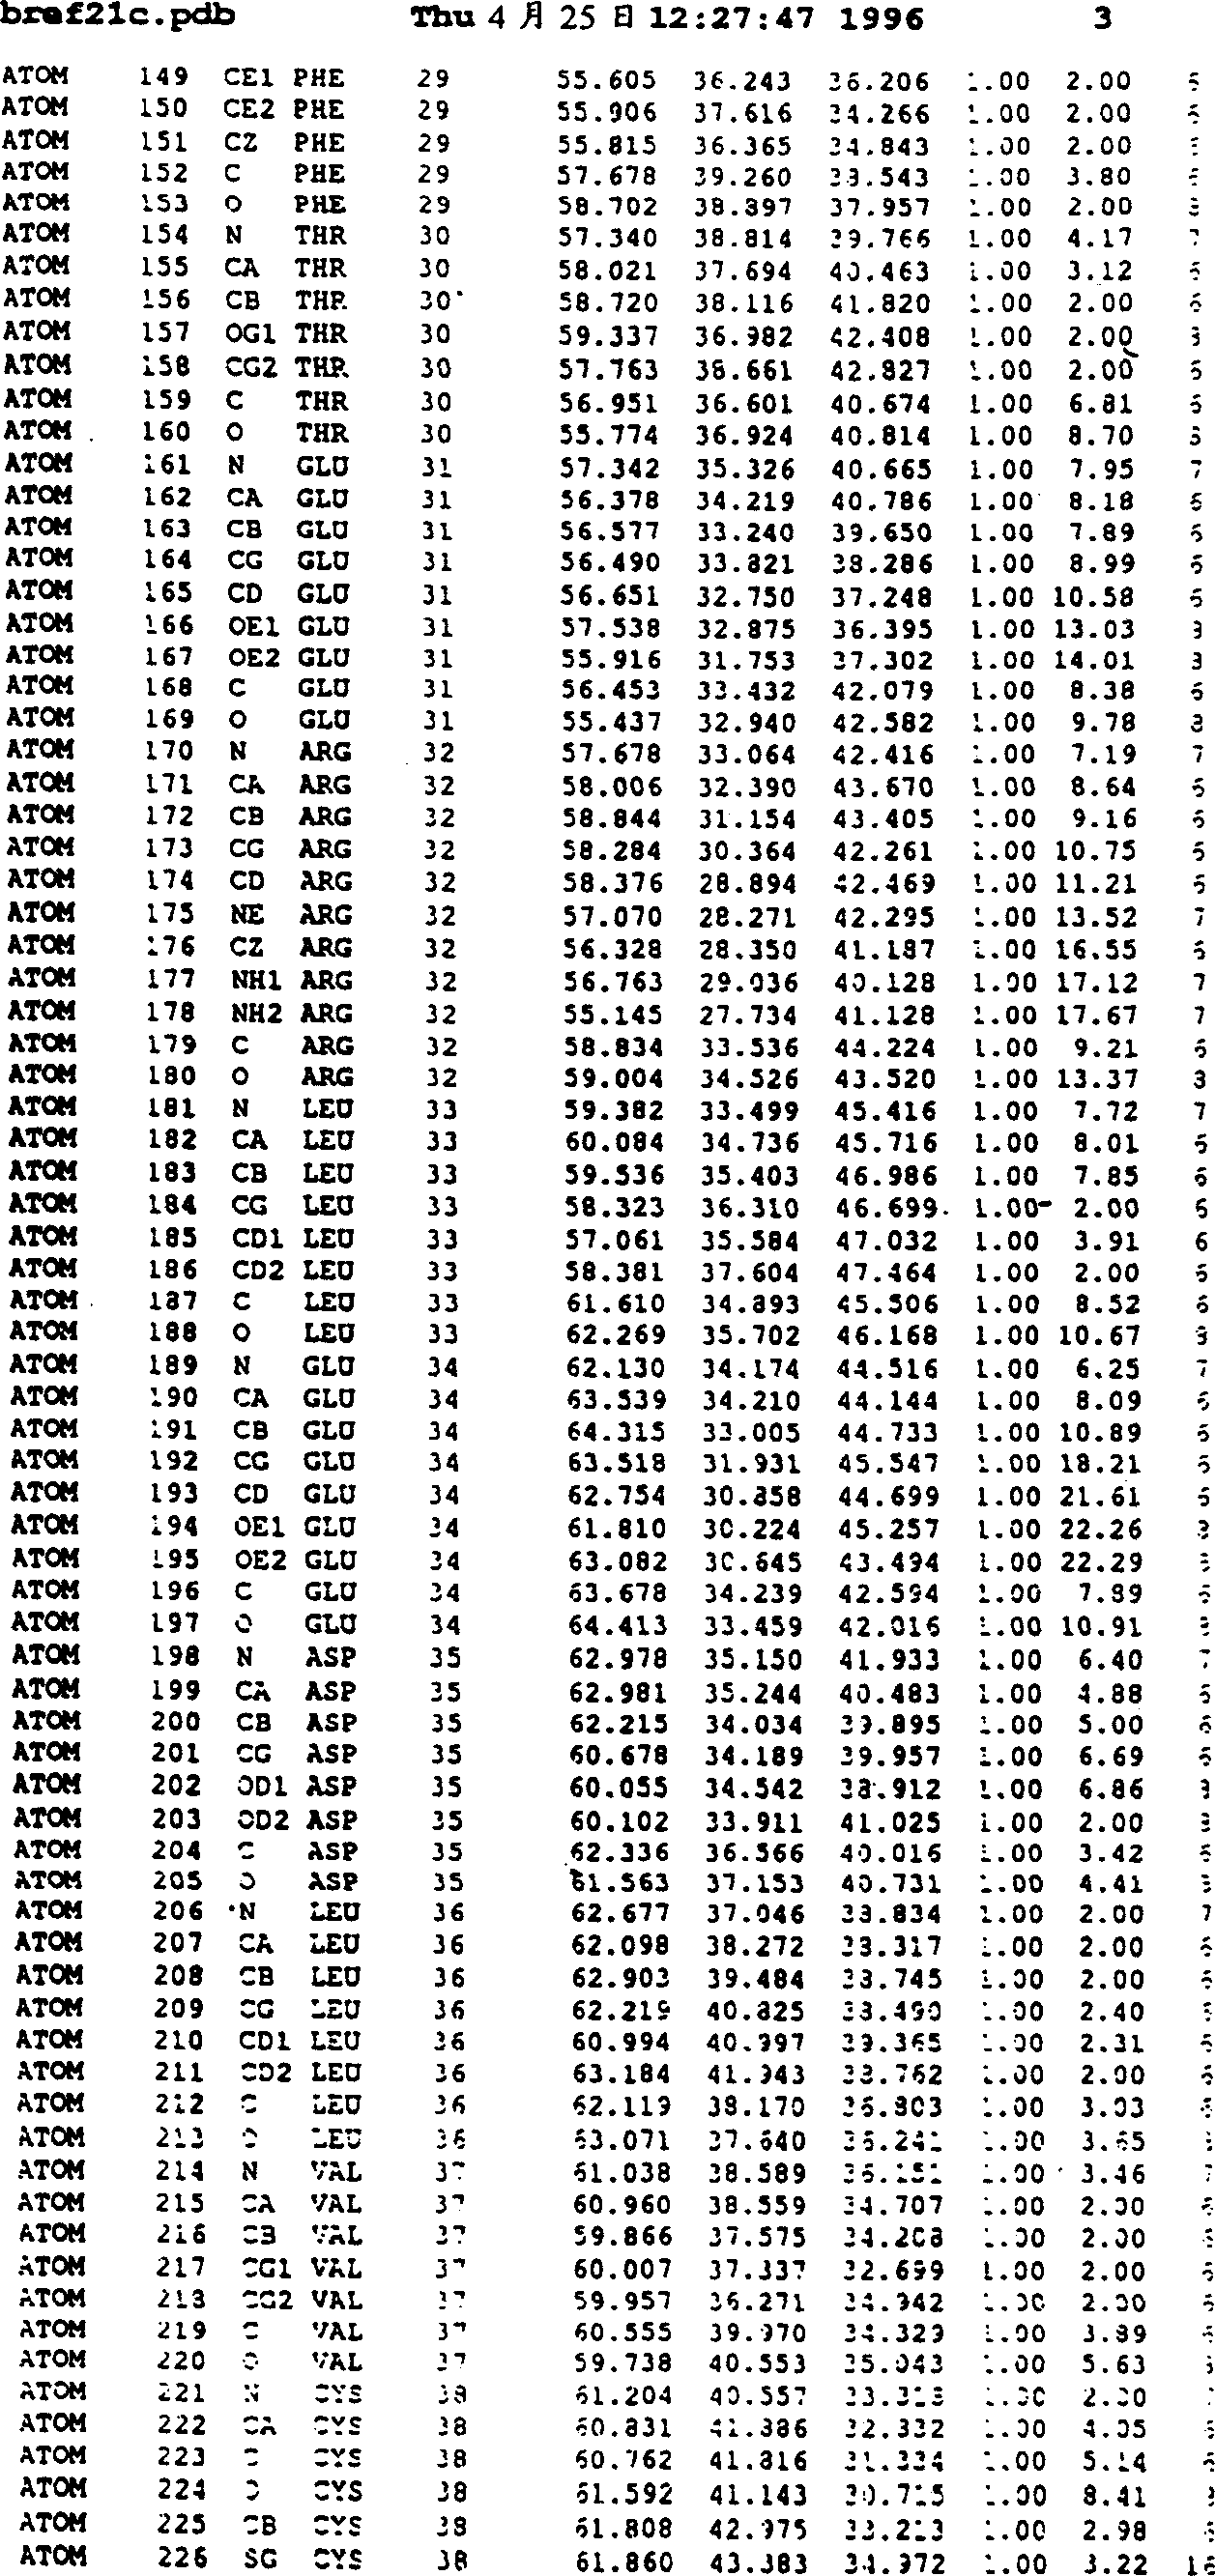


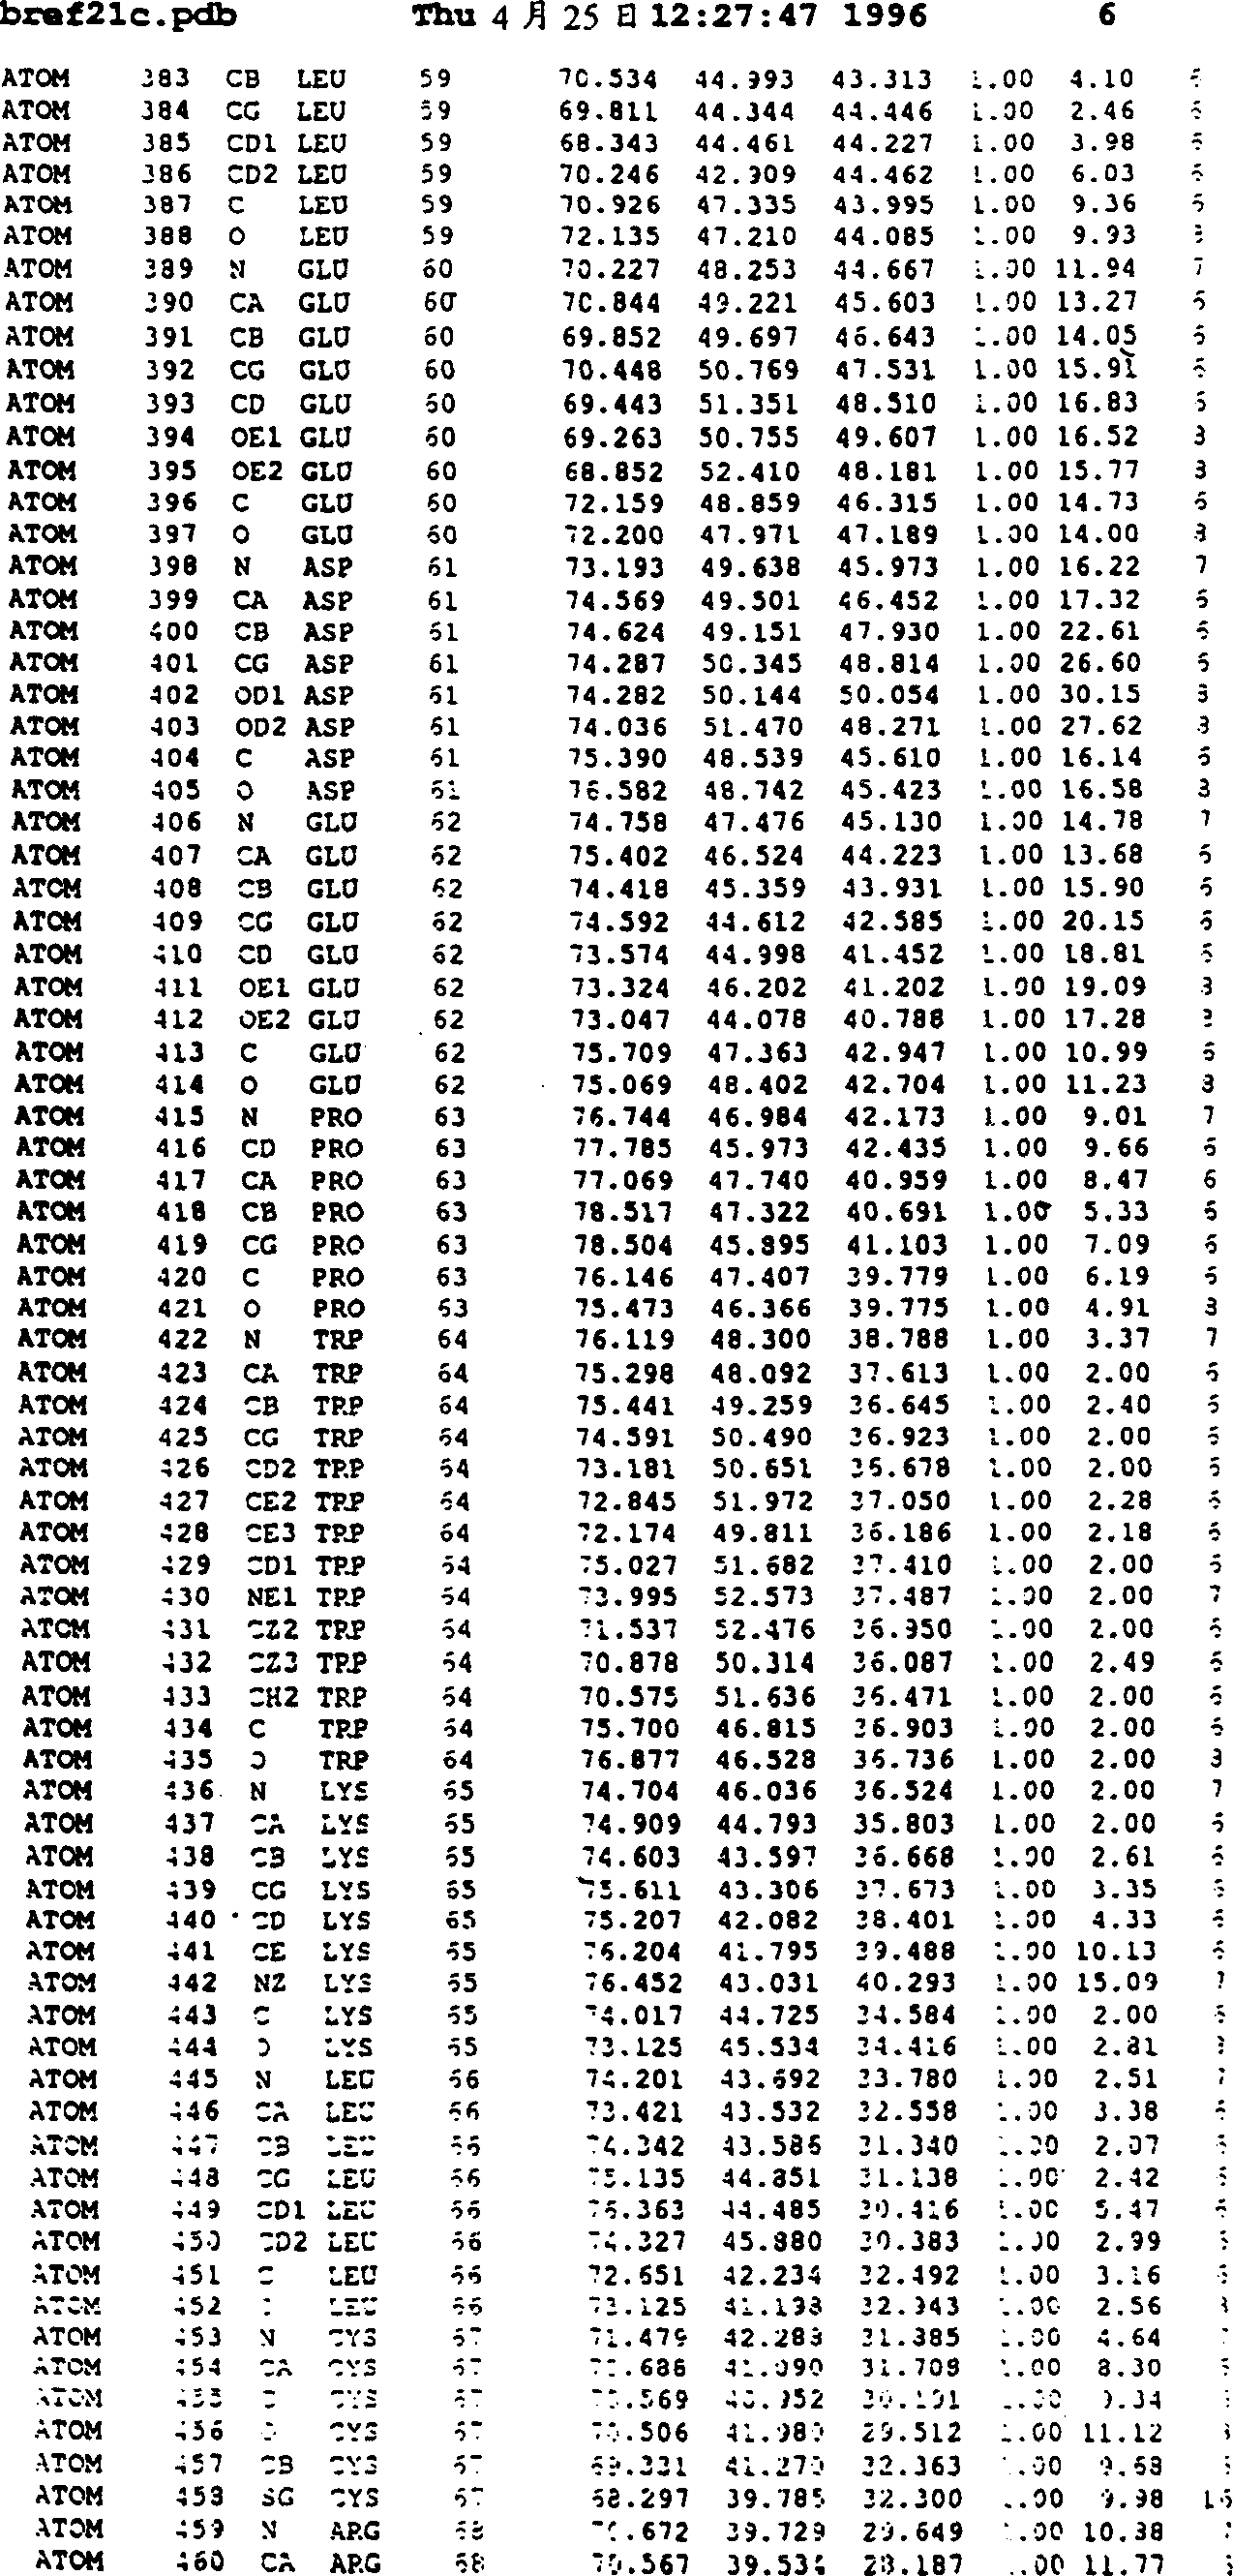


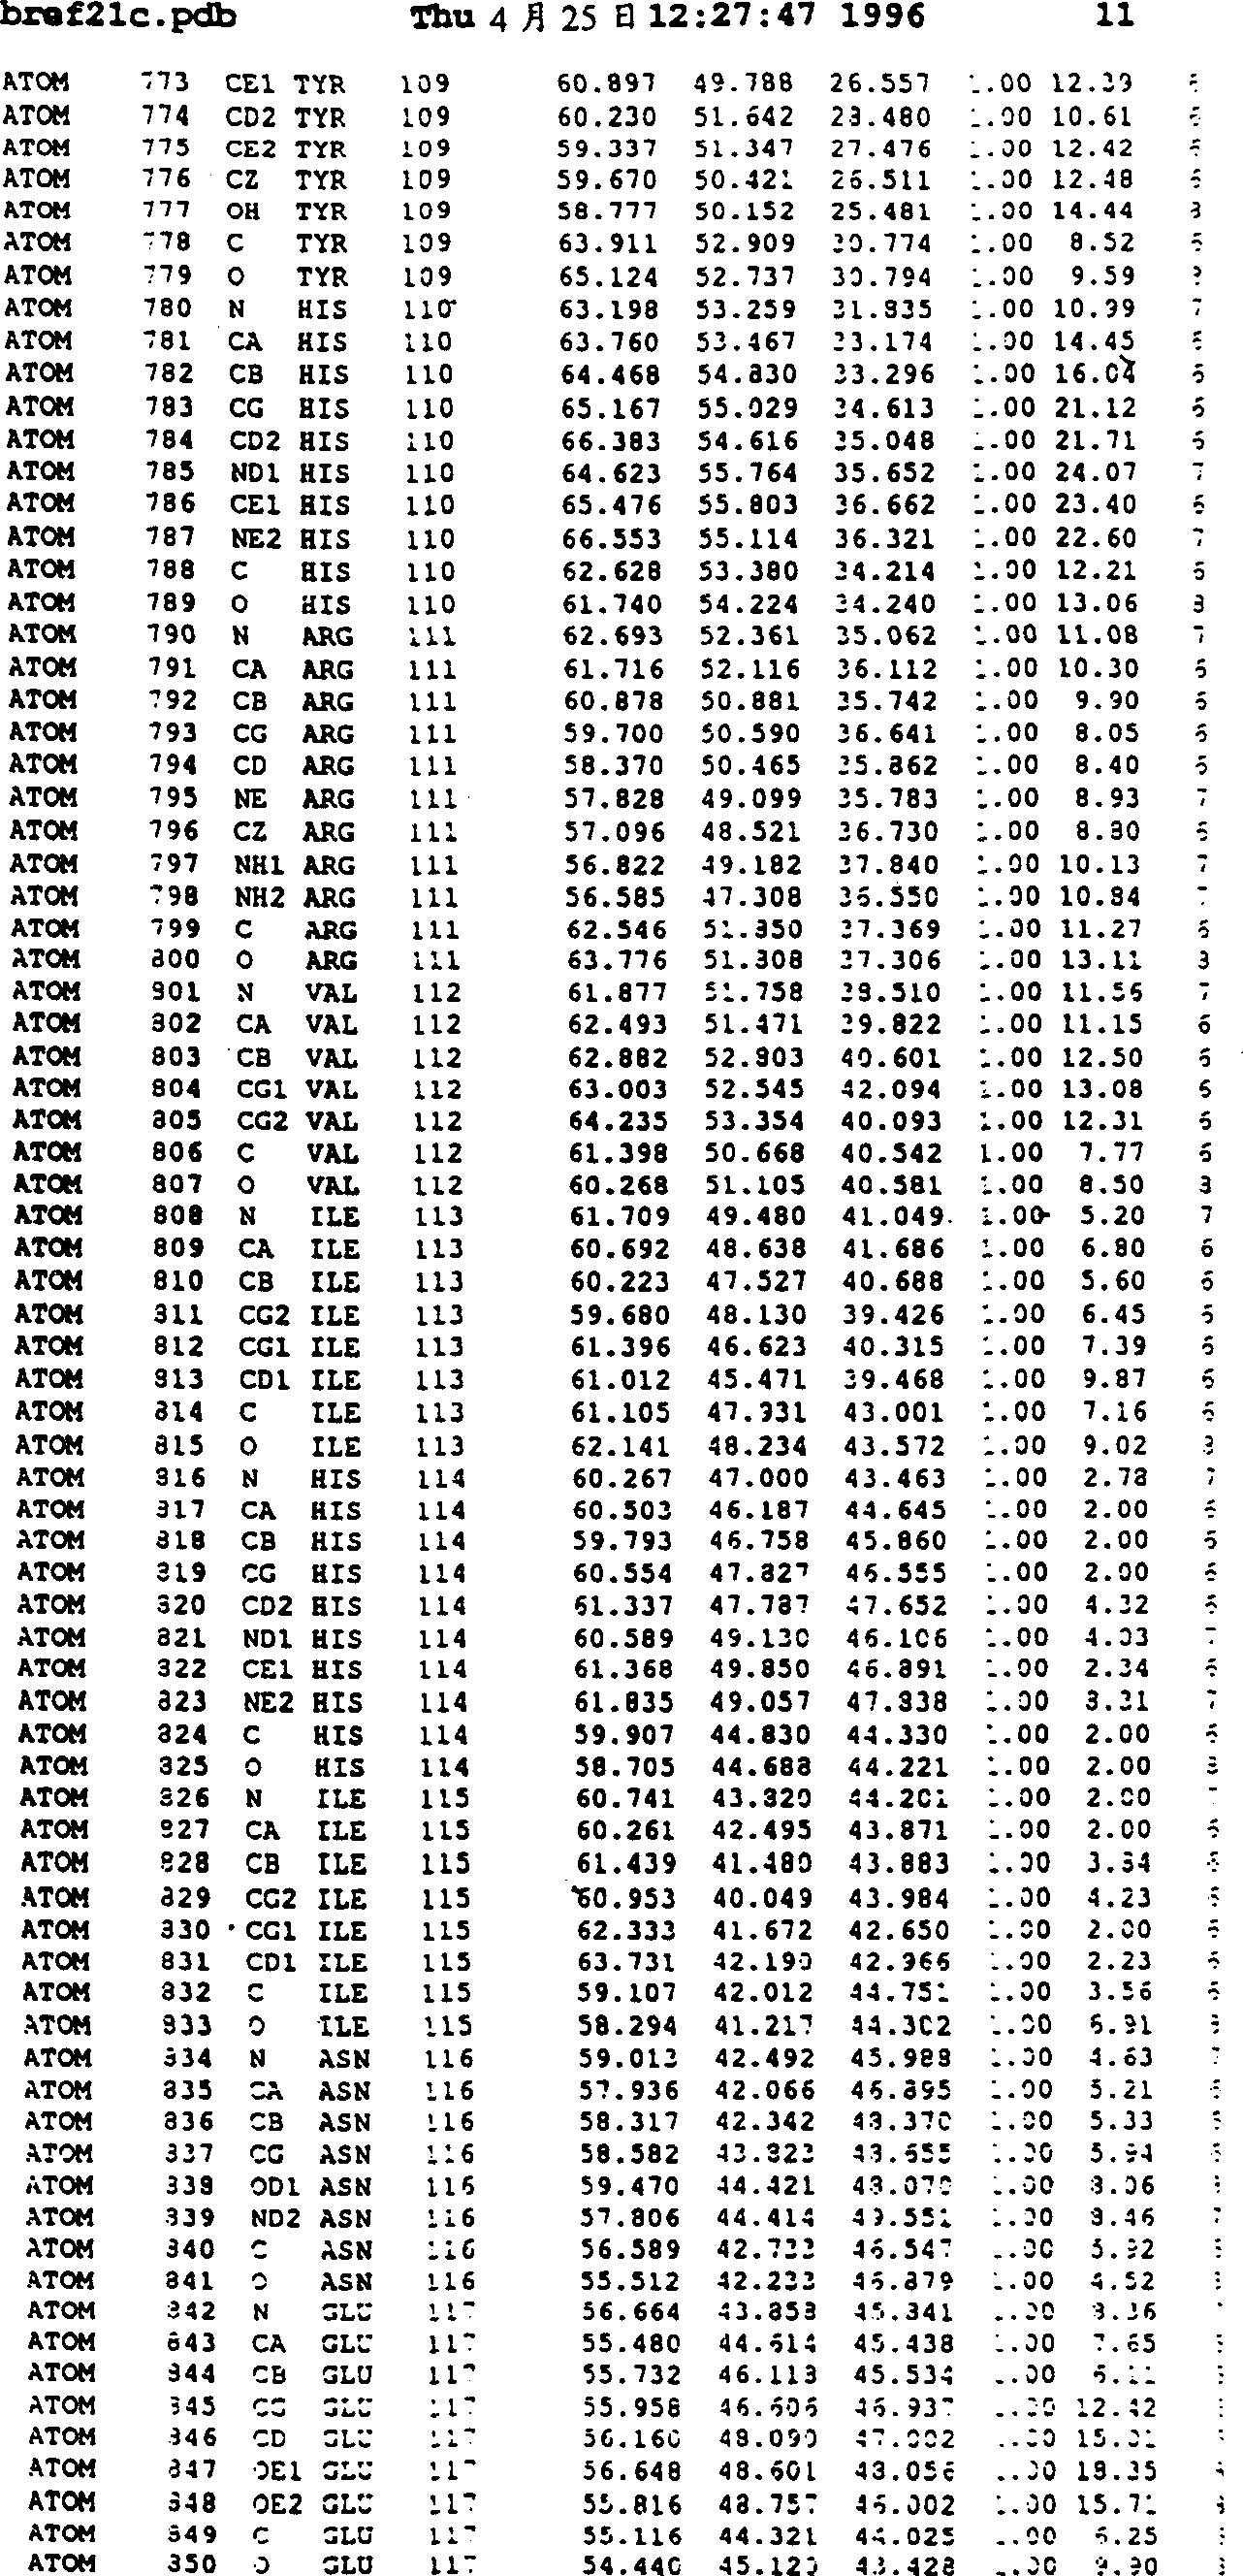


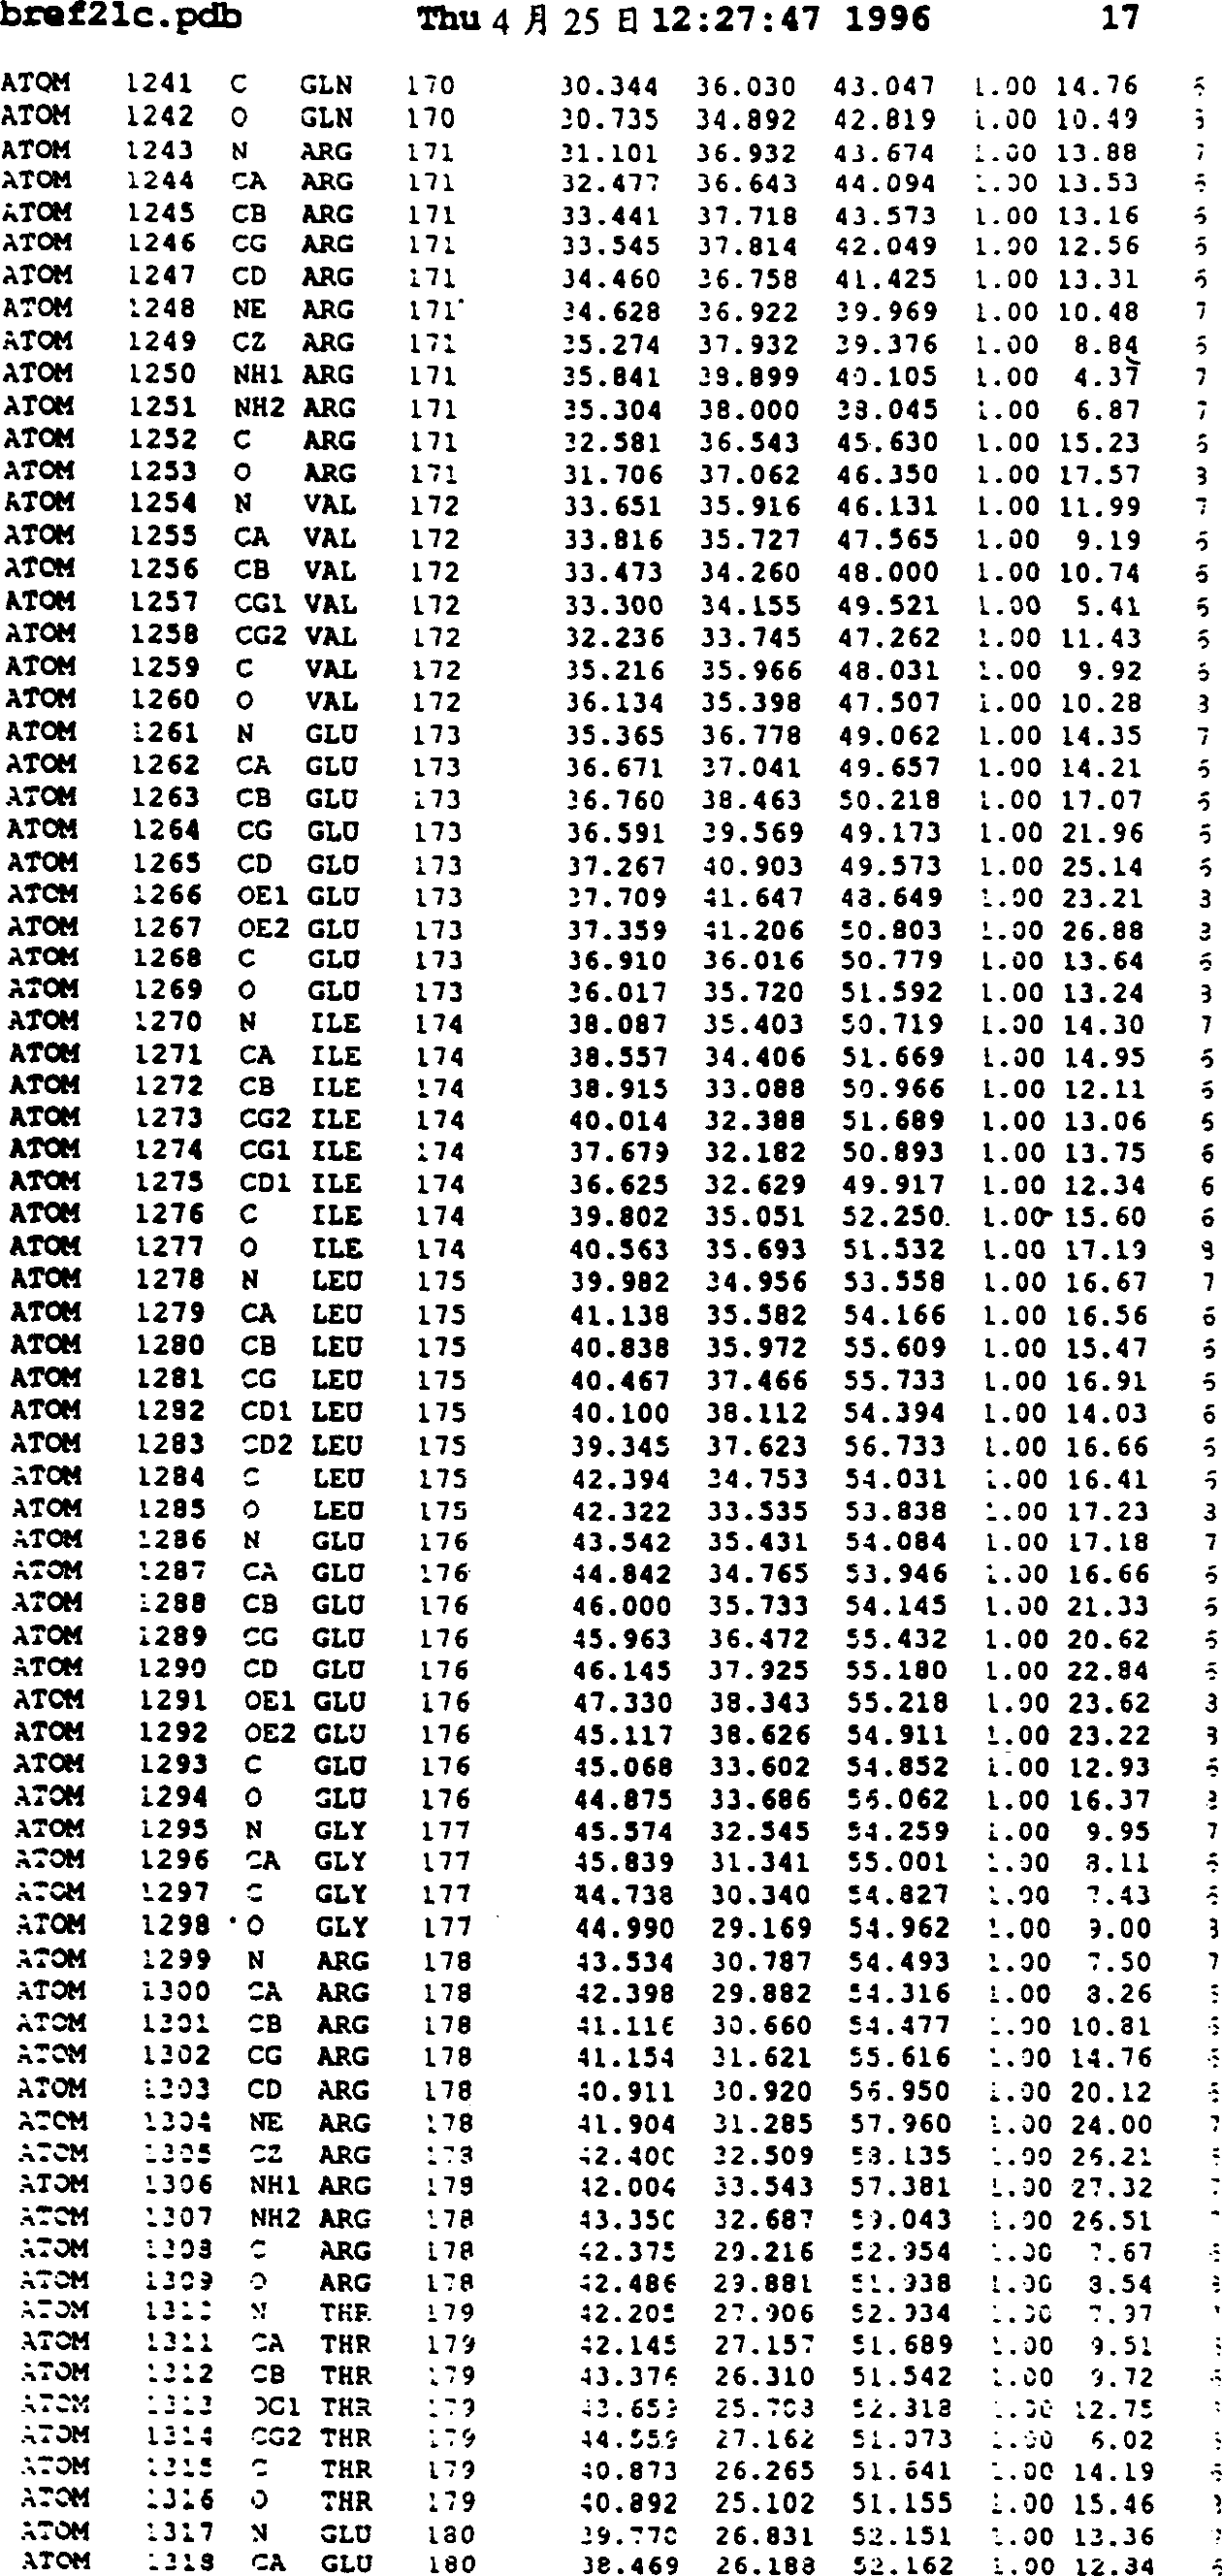
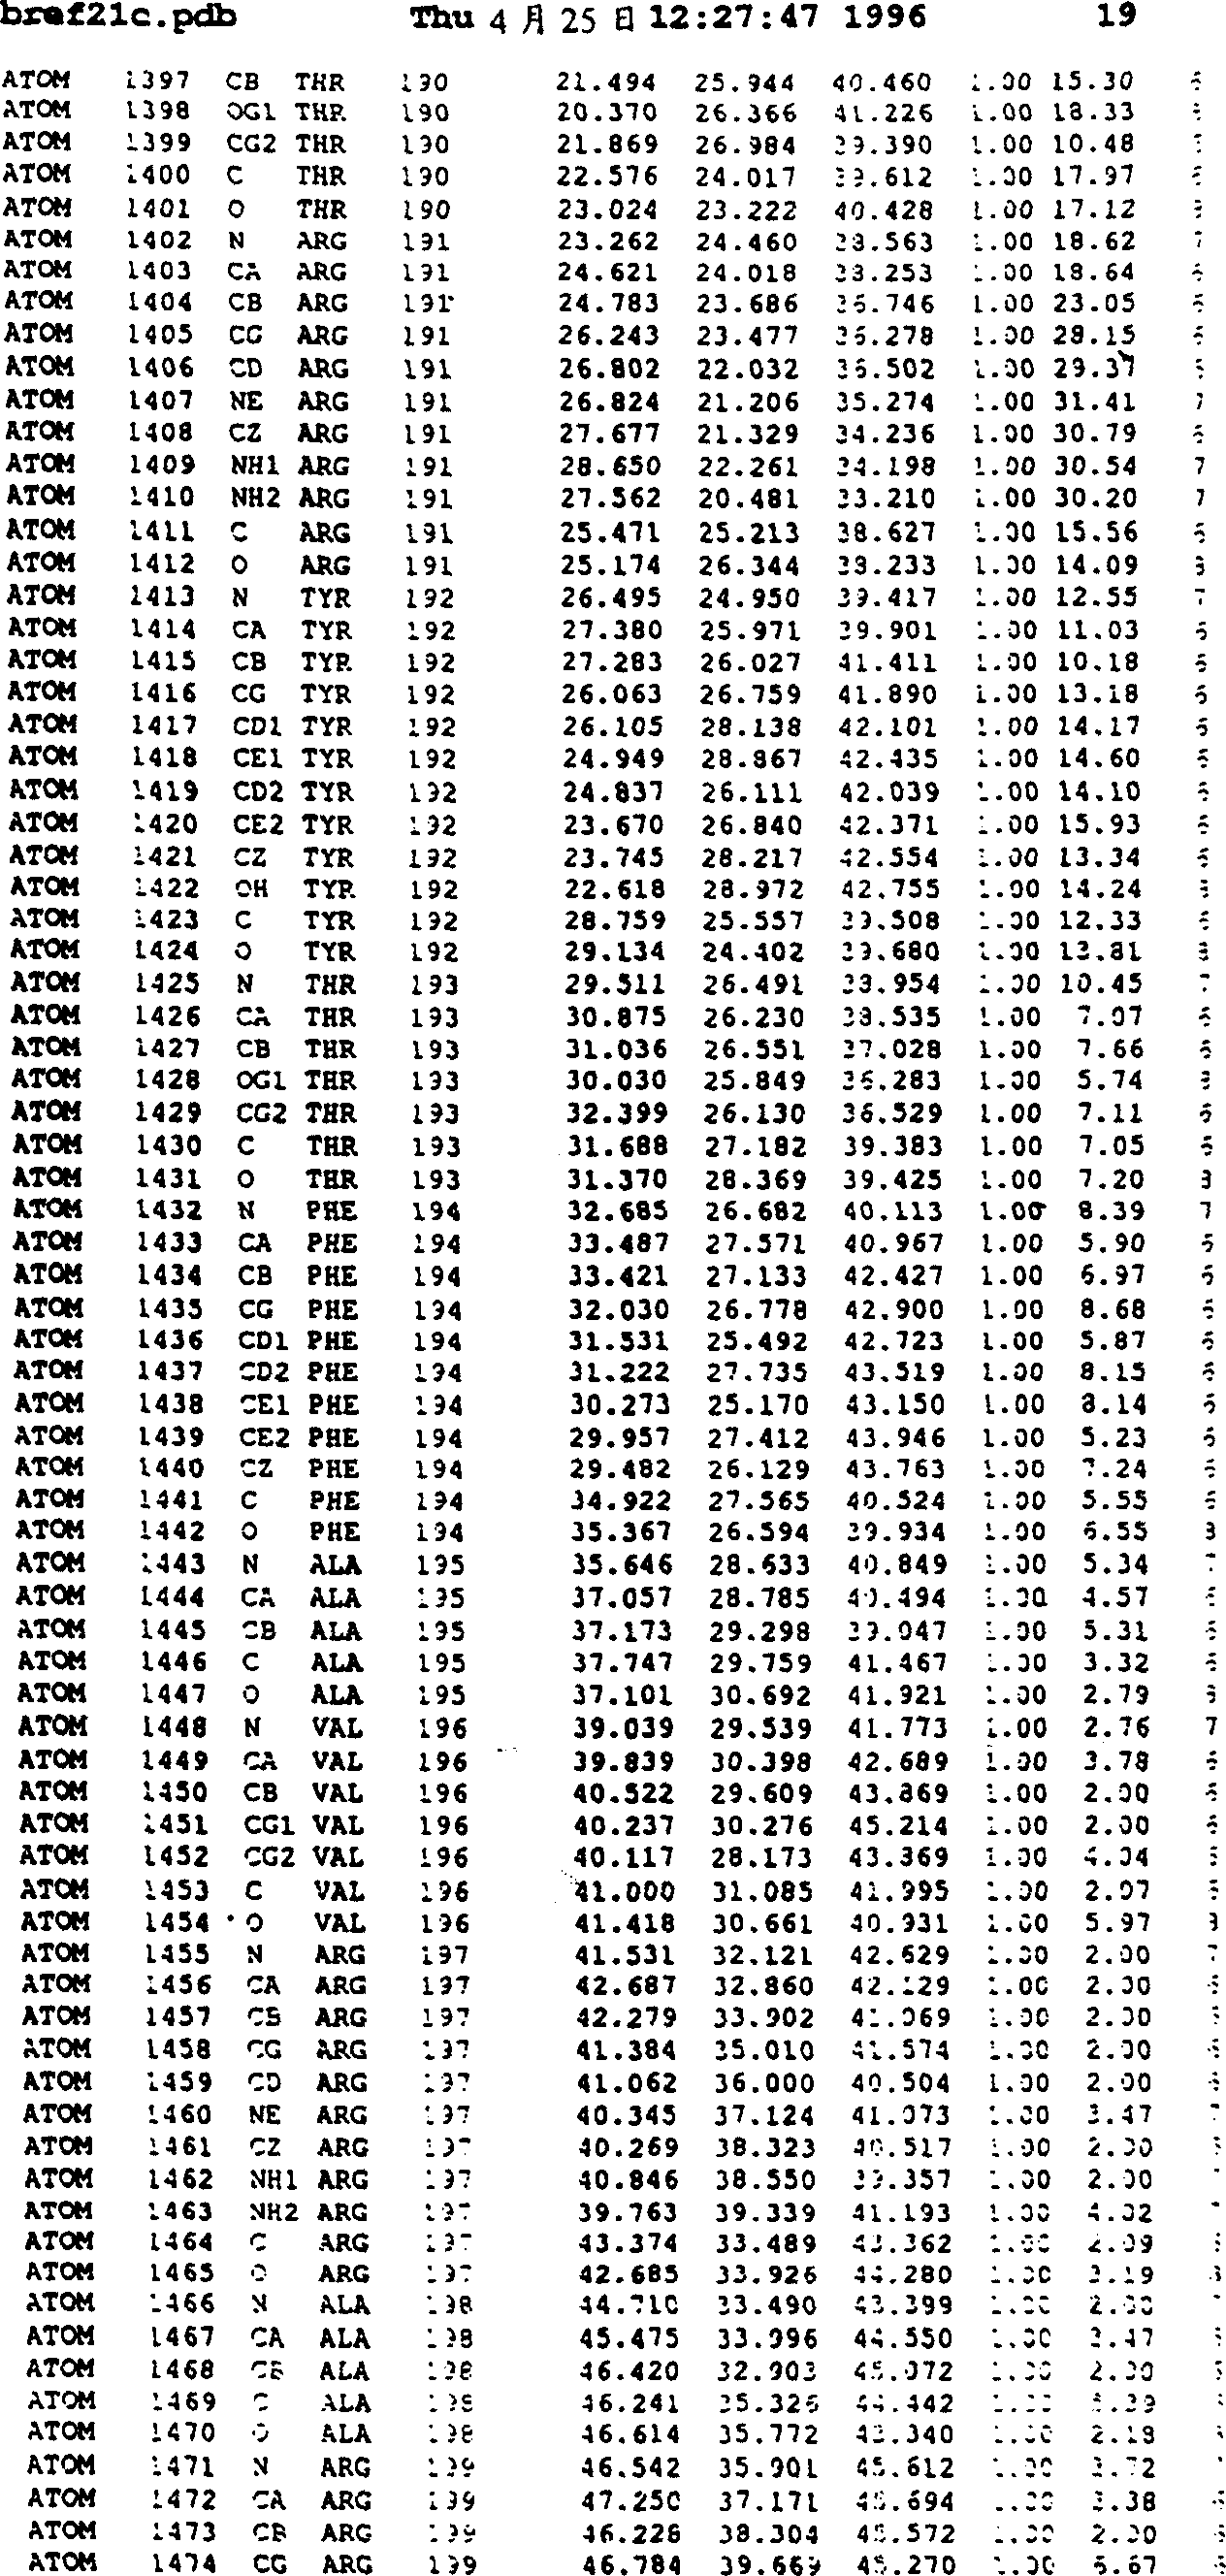

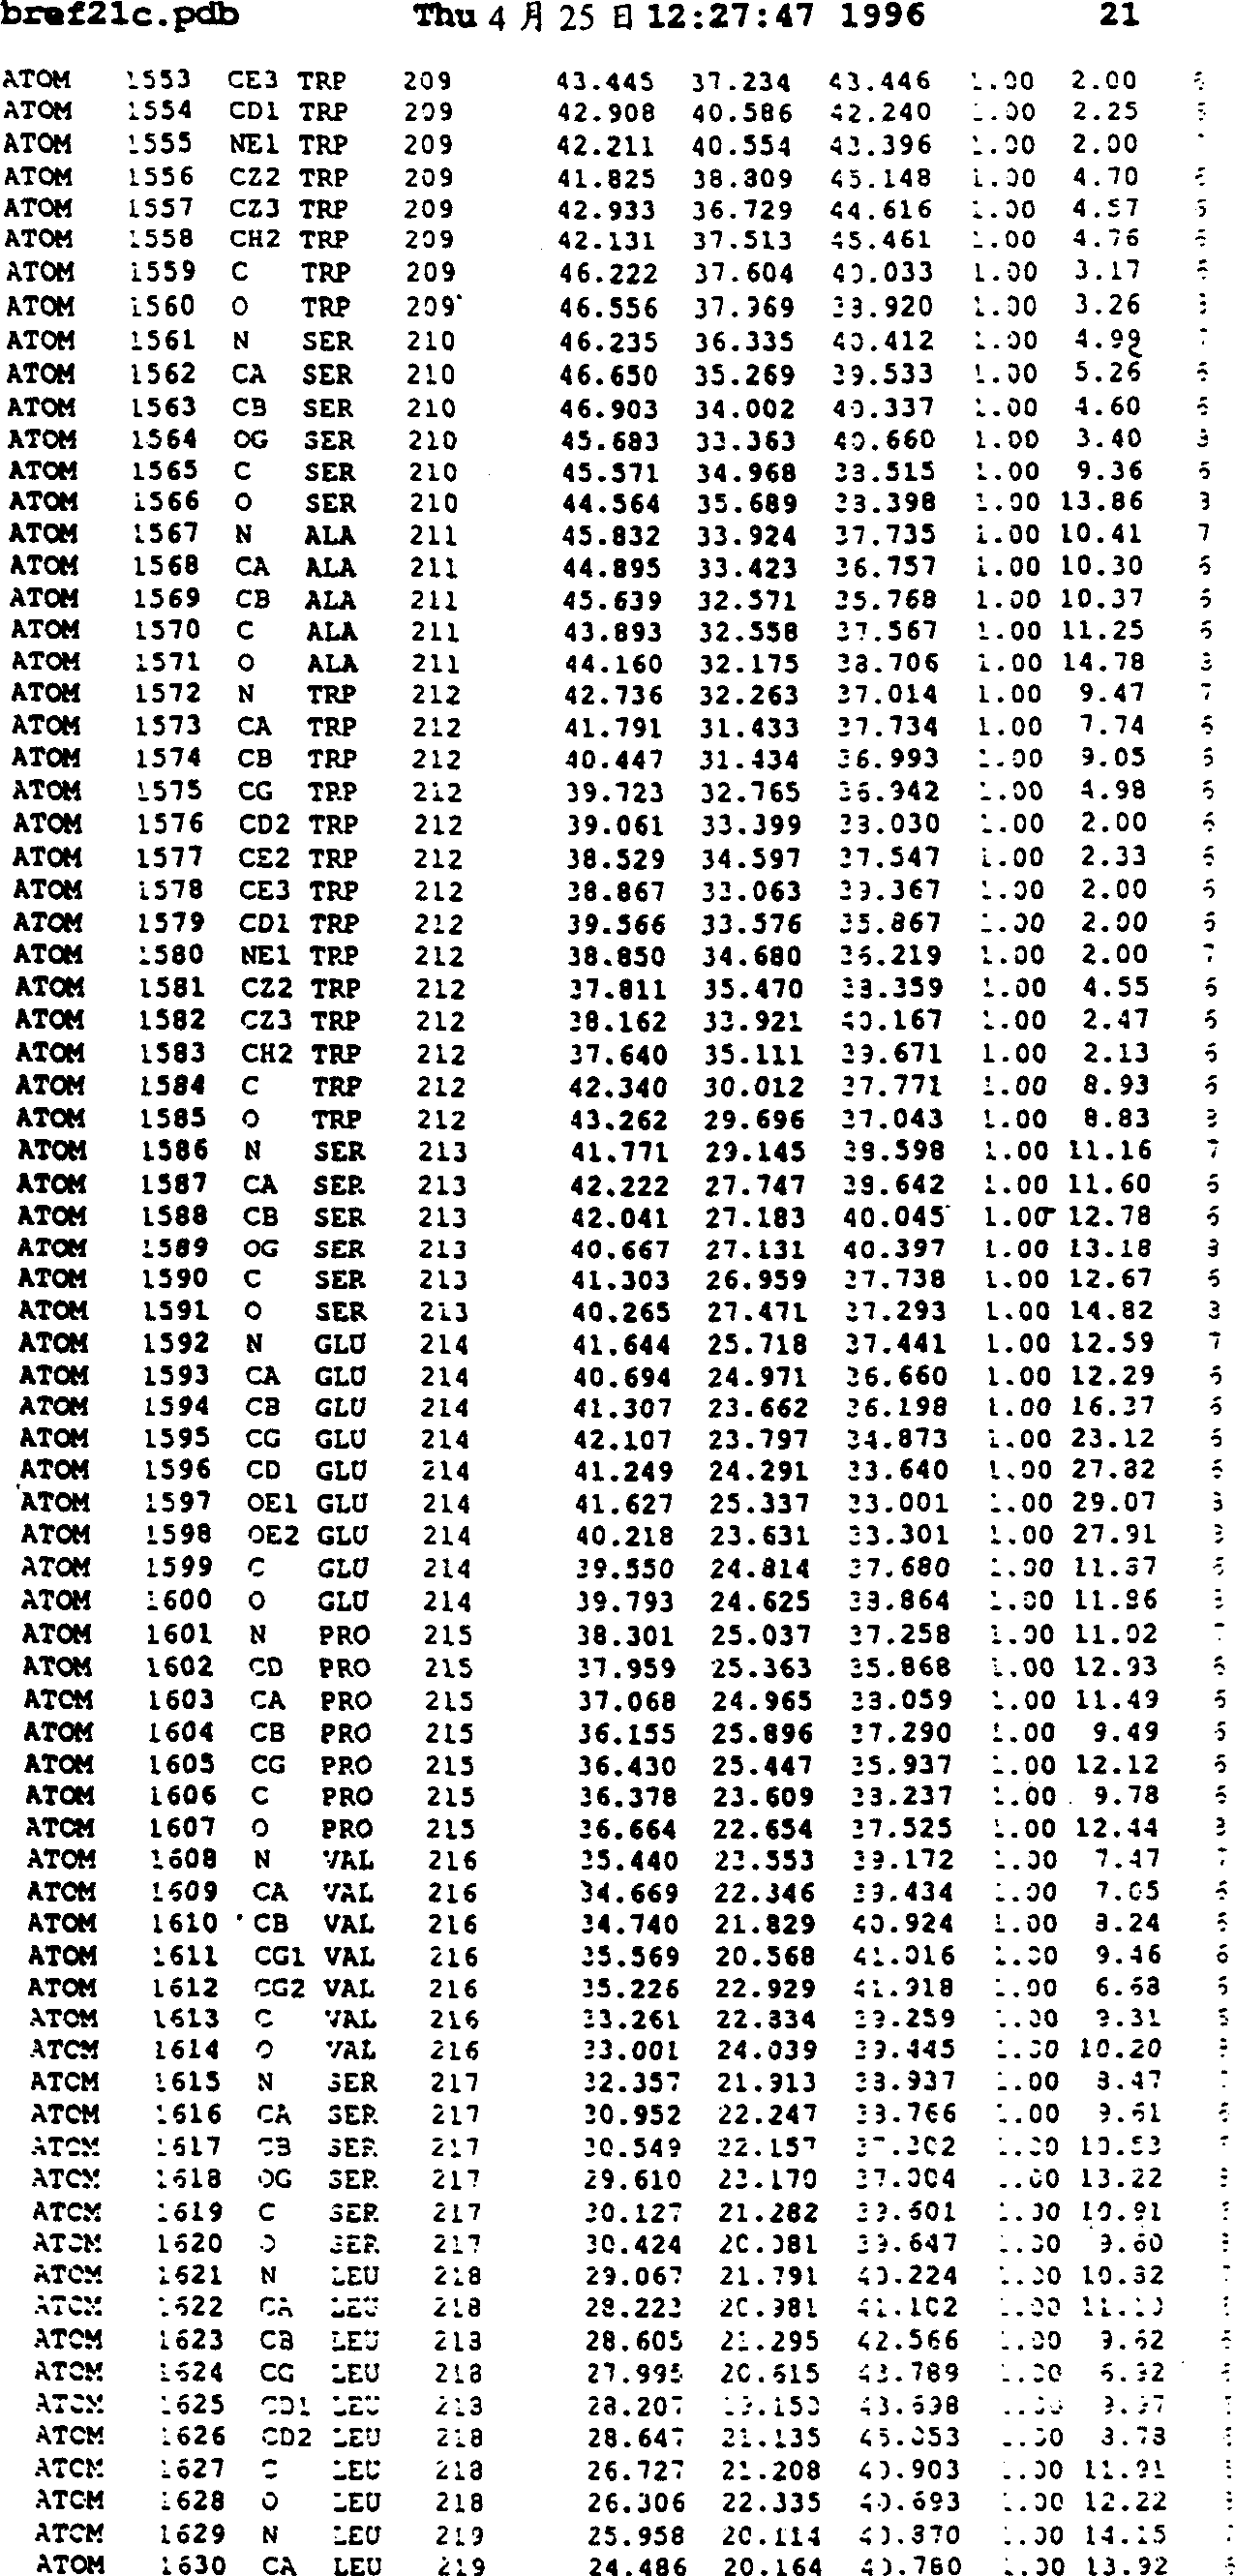


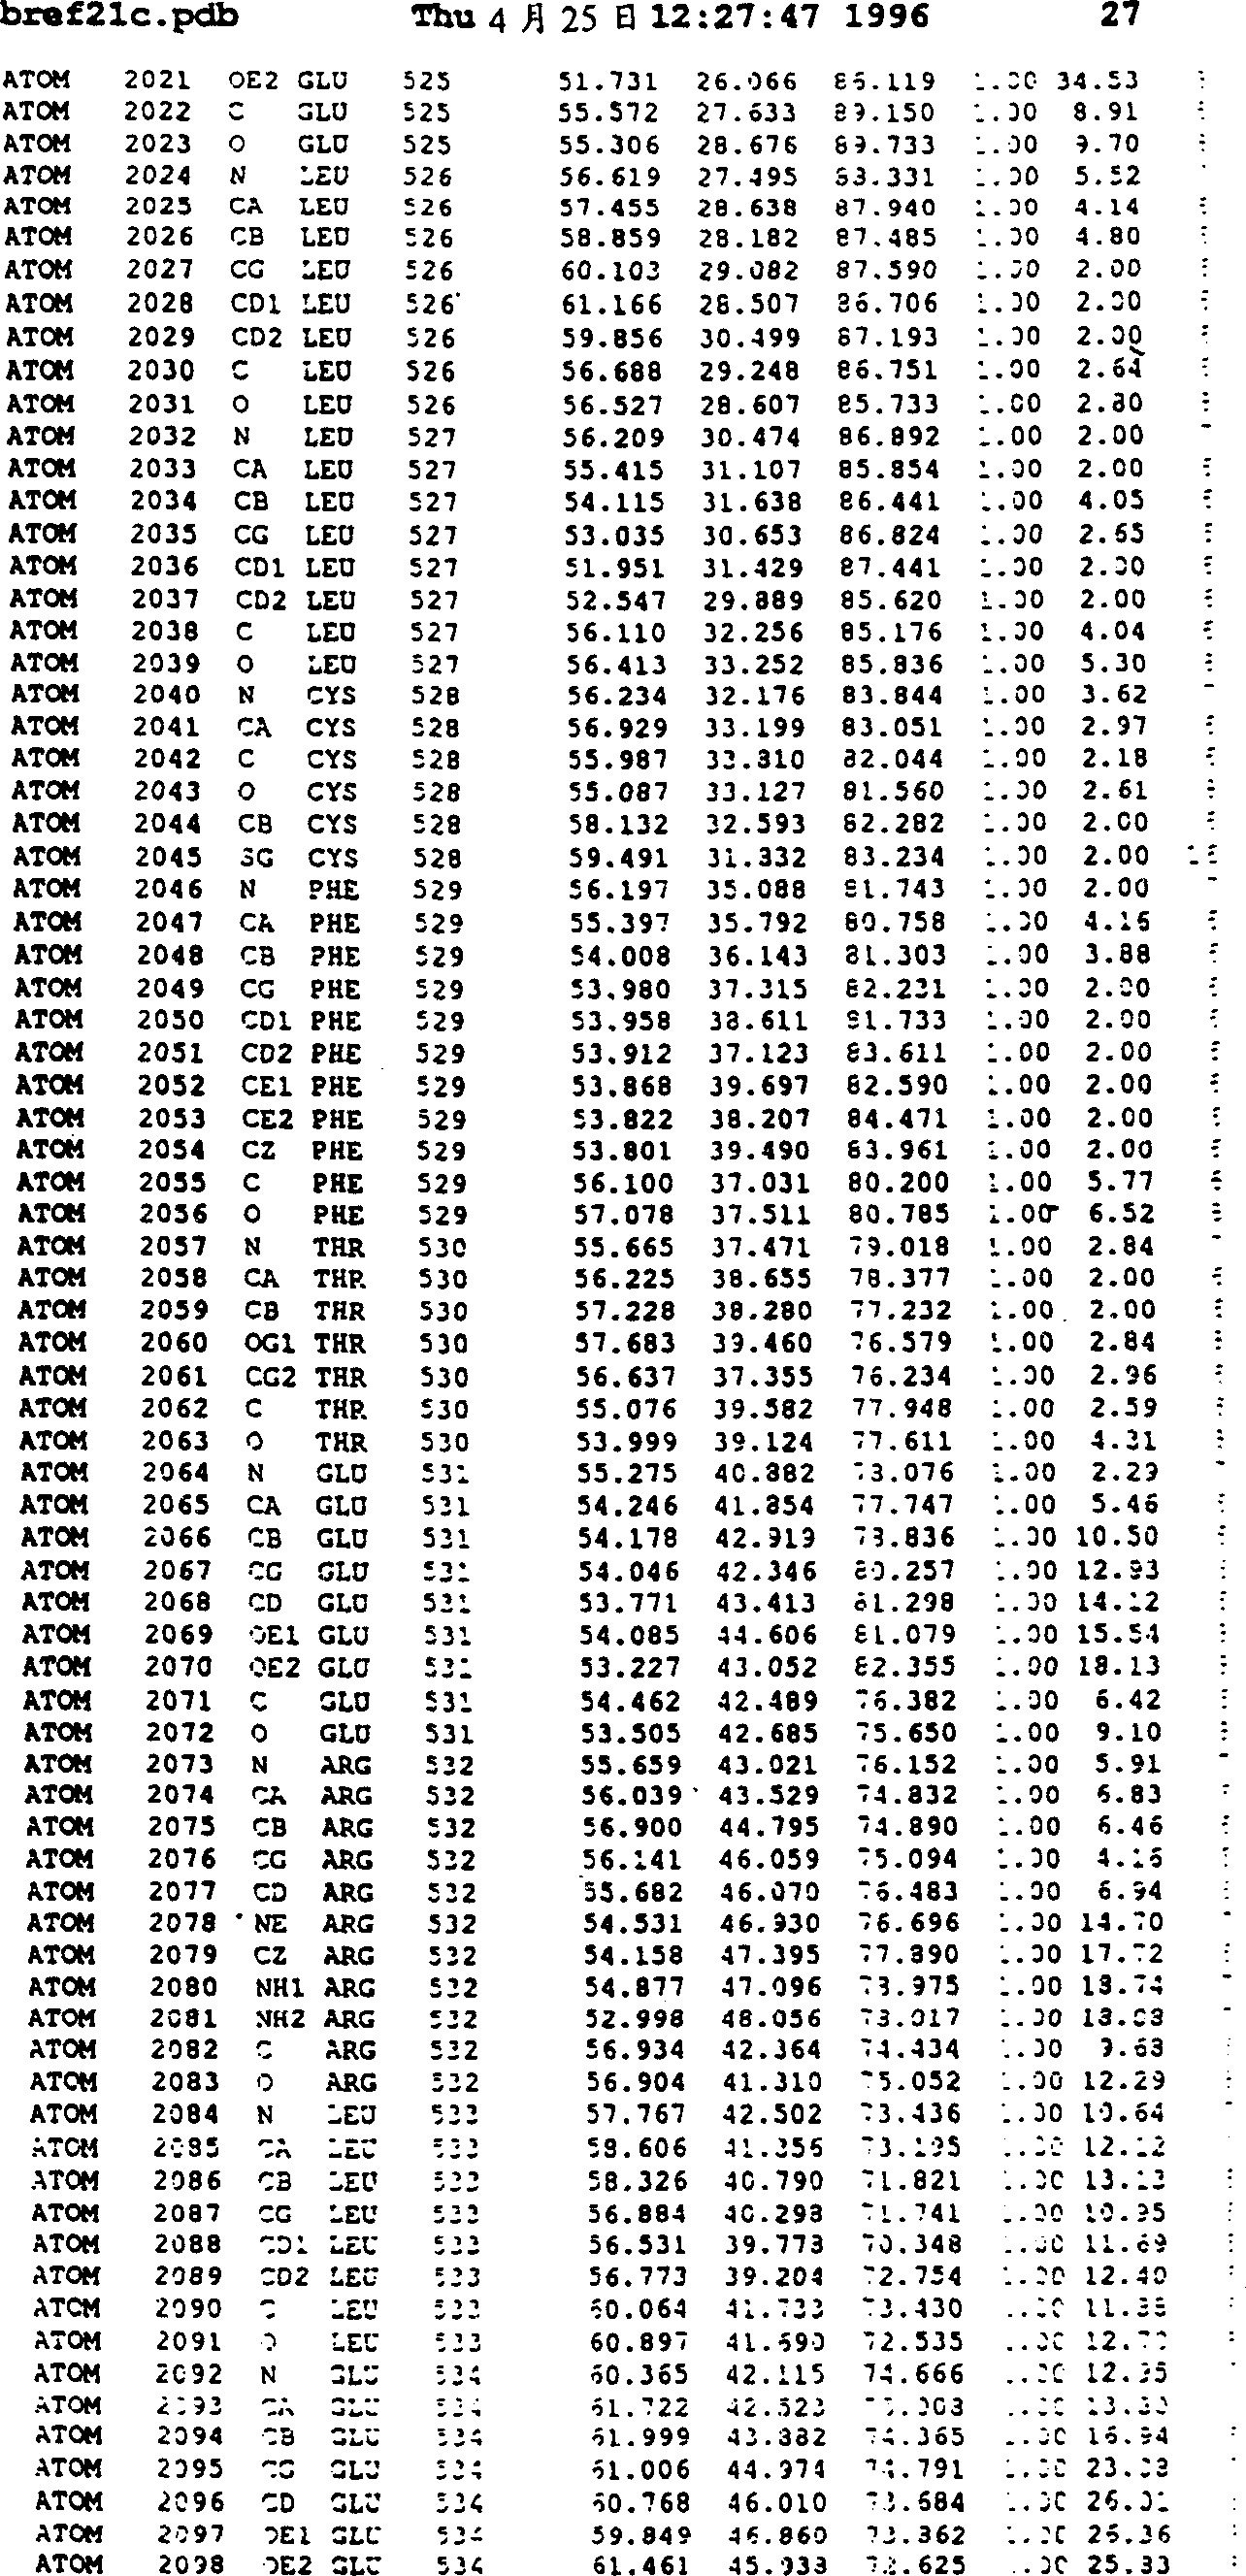
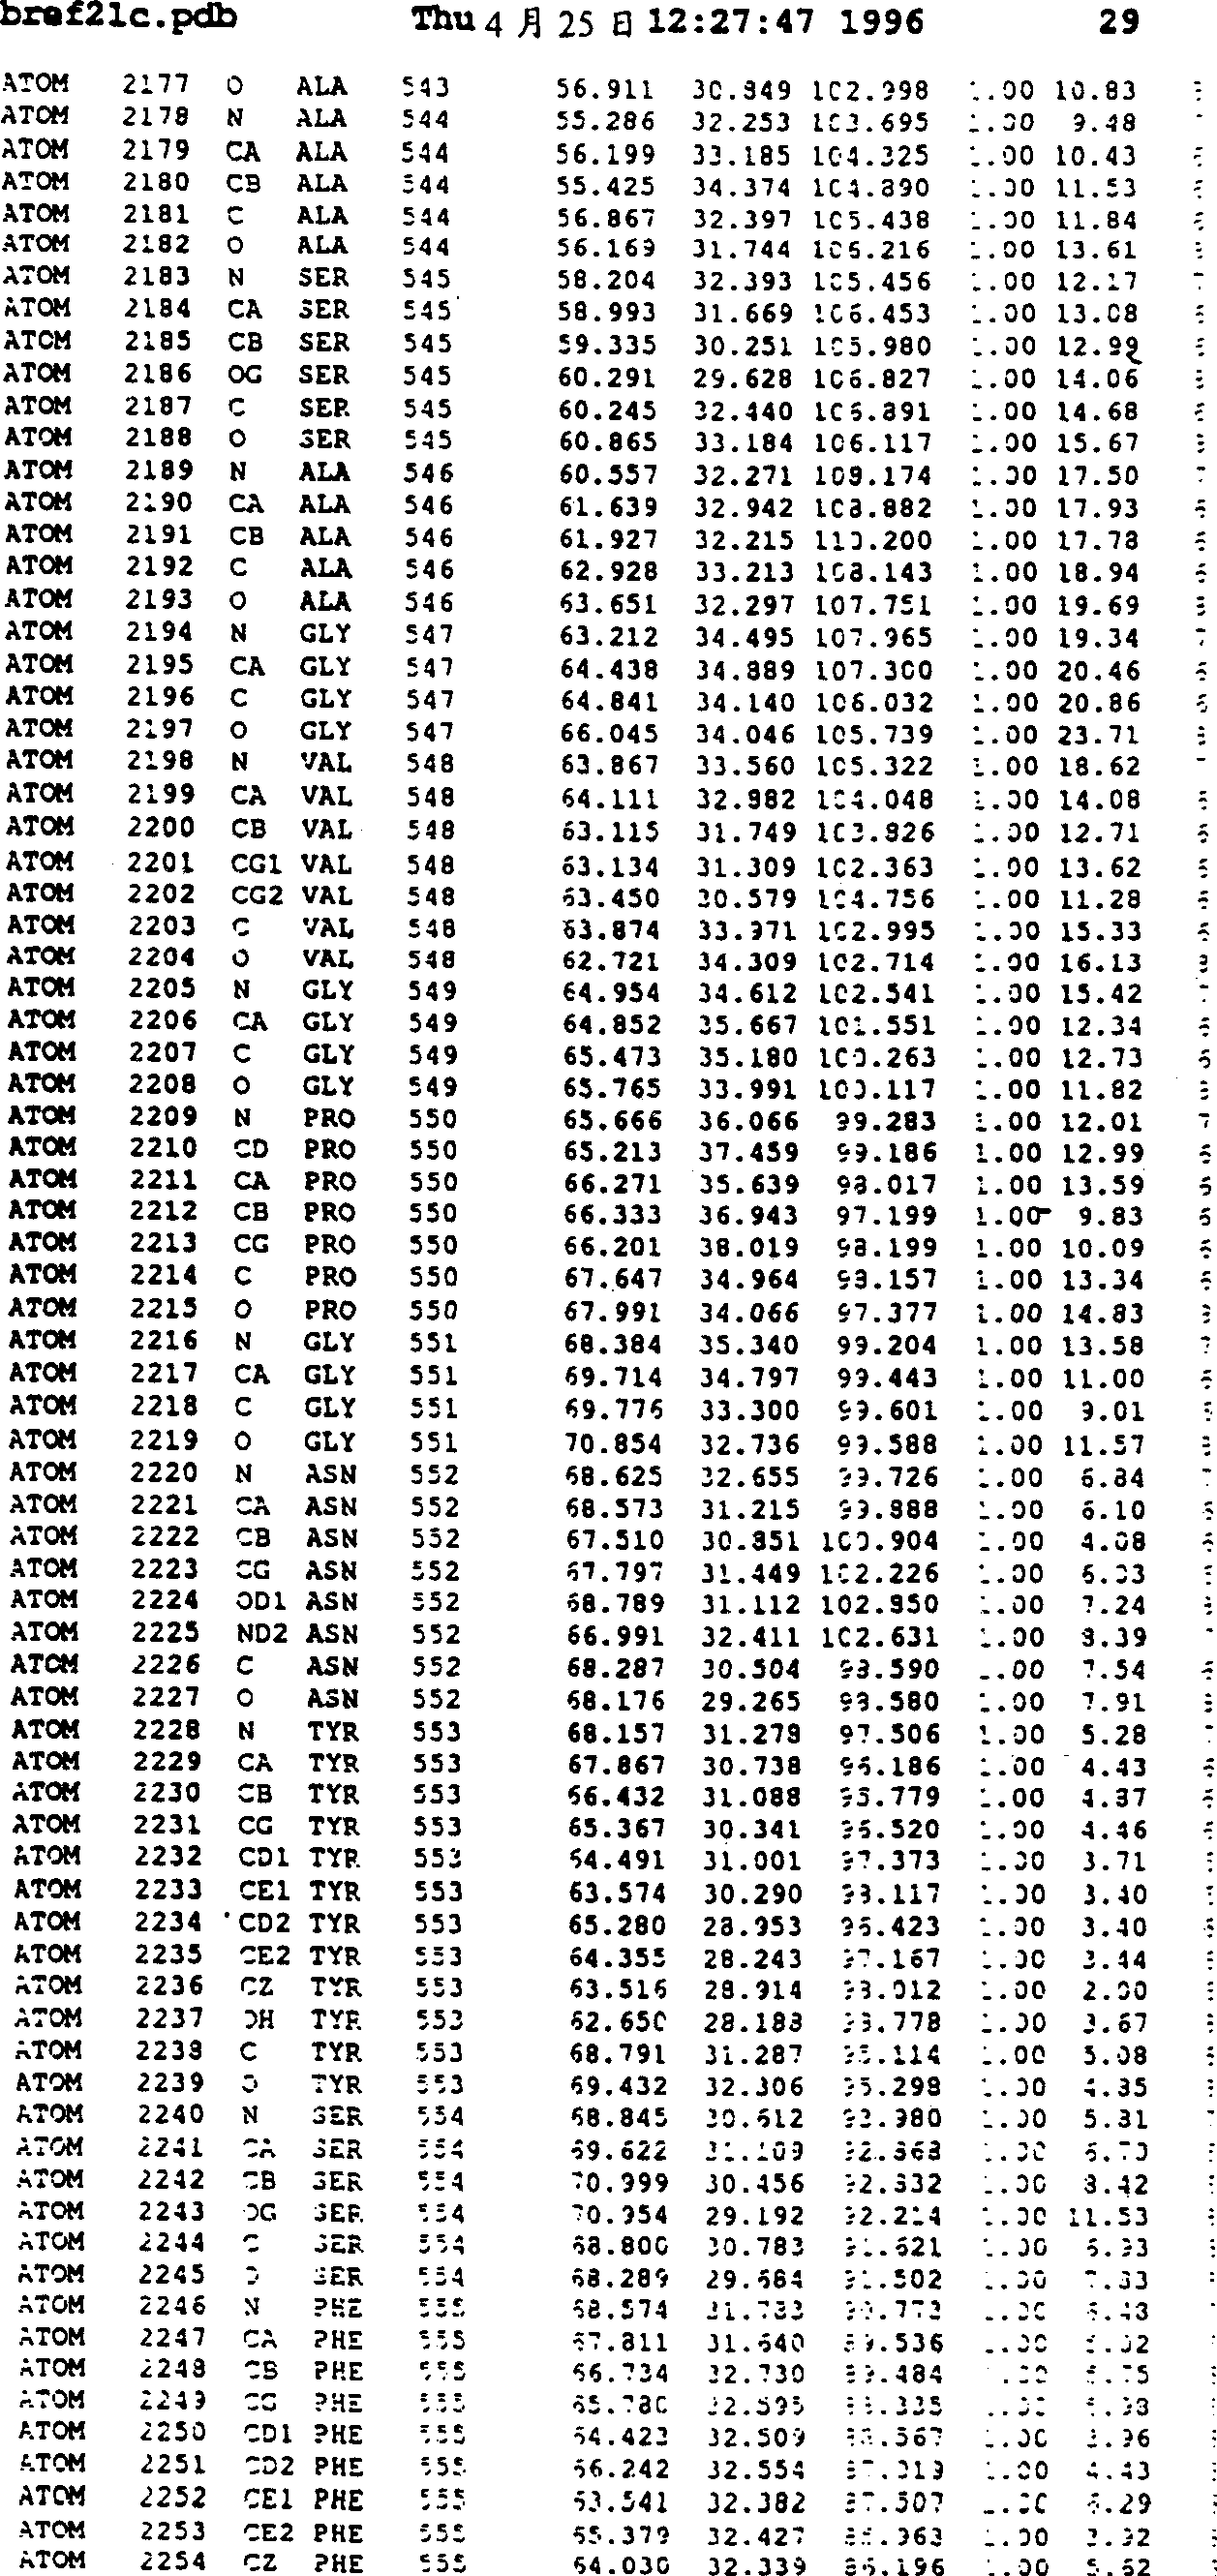
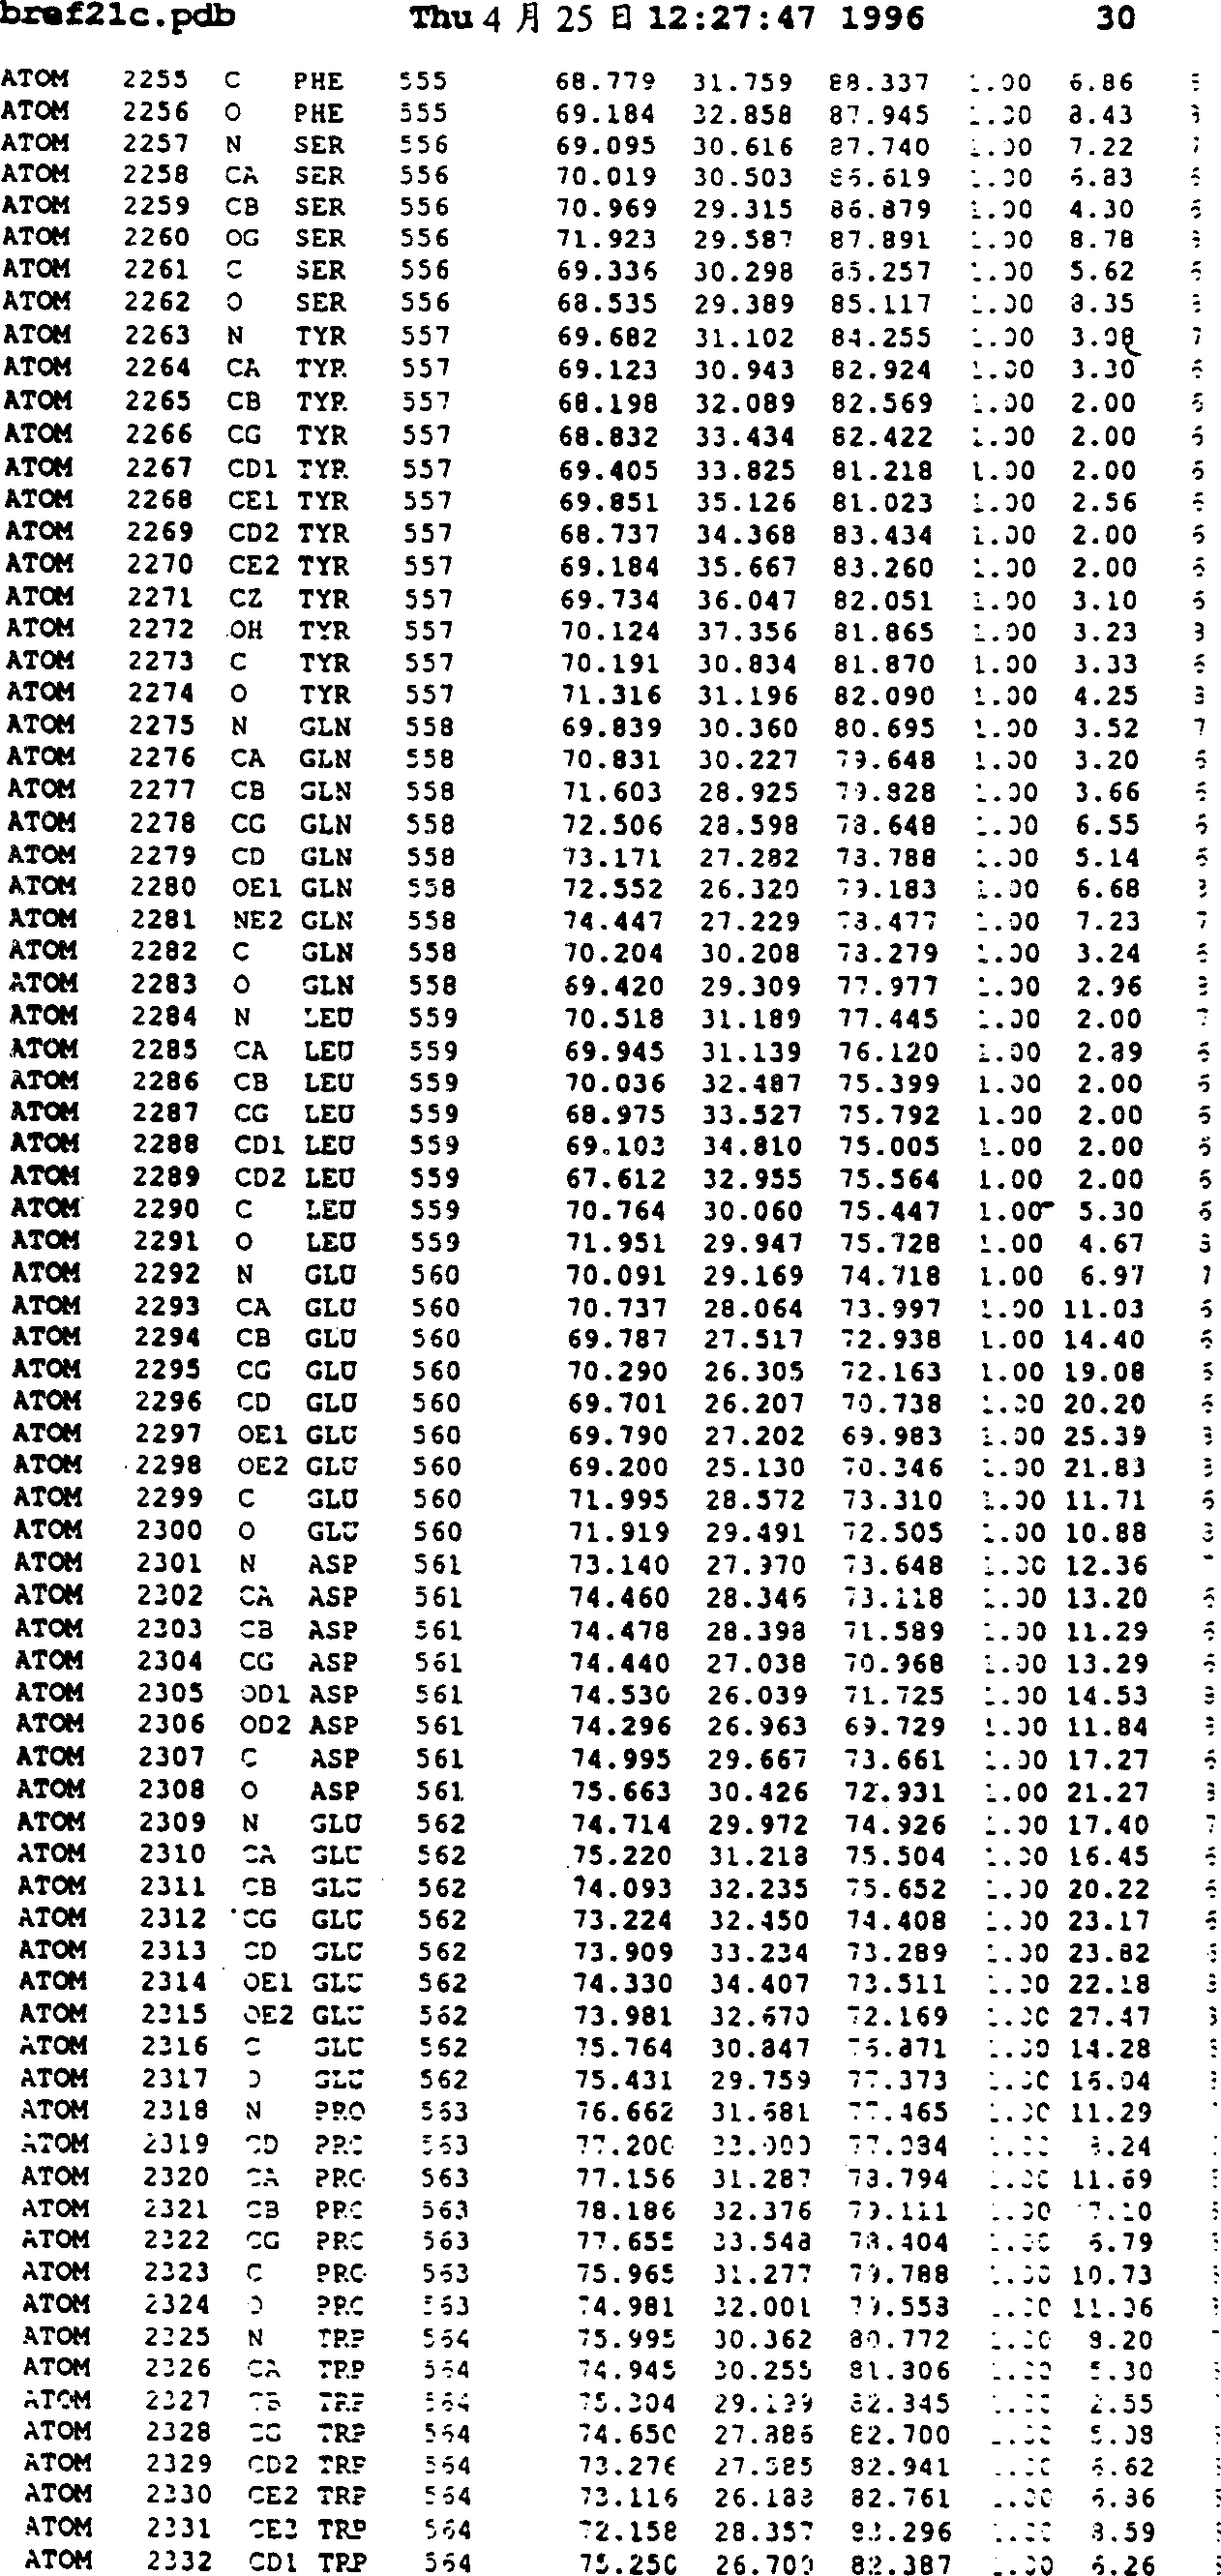

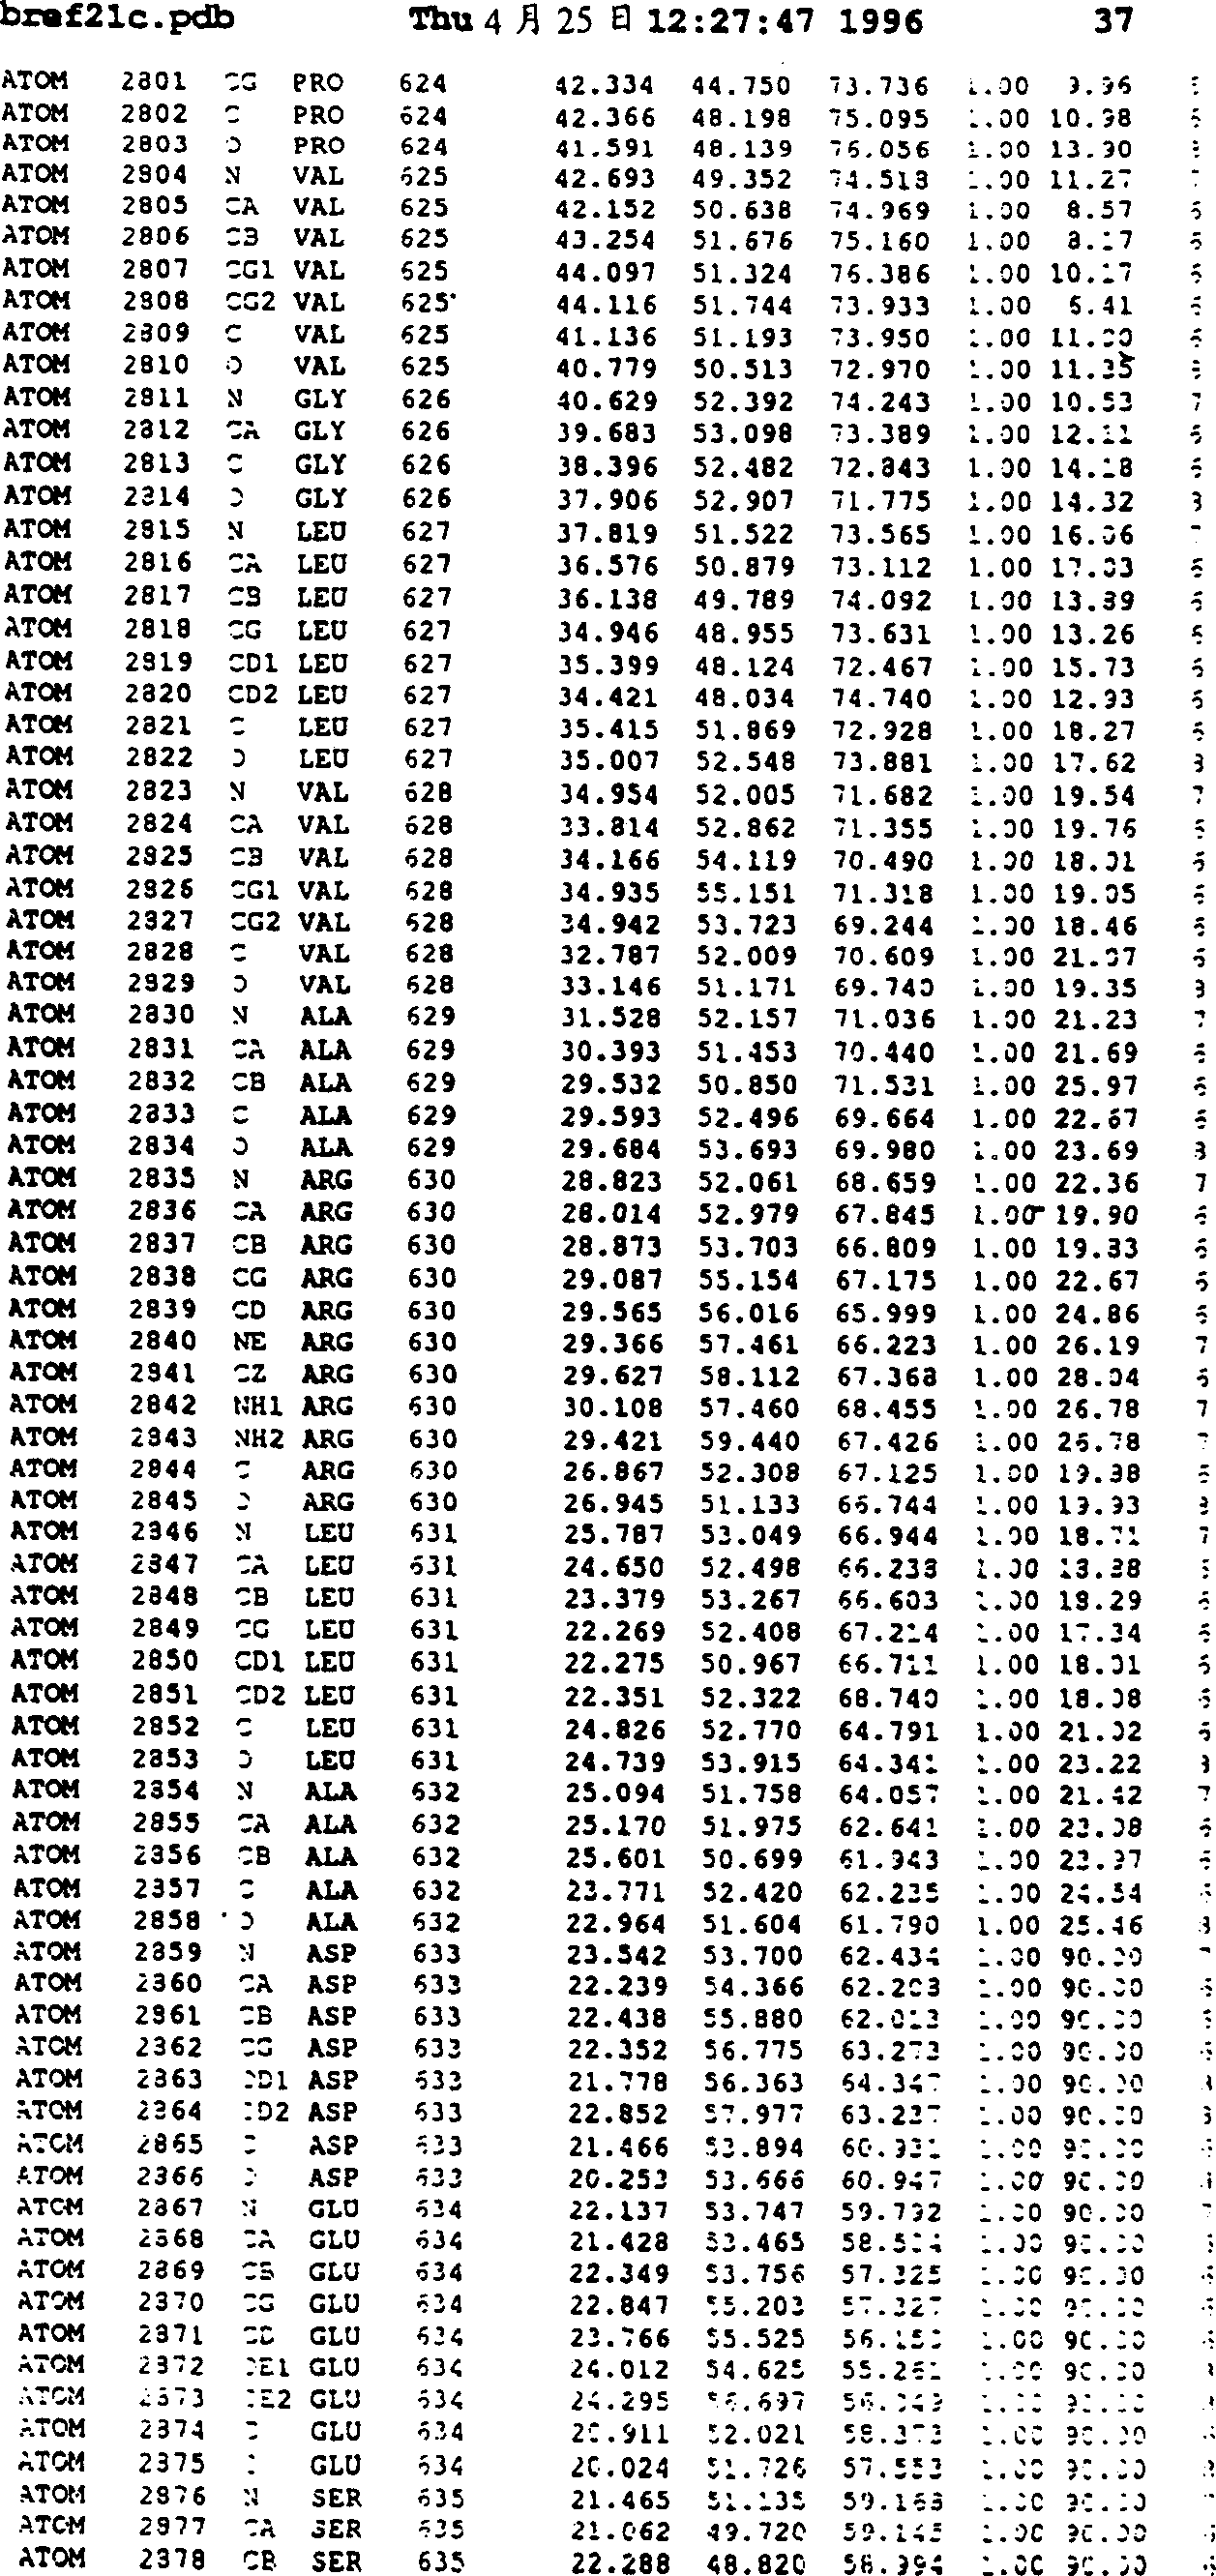

 bref21c.pdb Thu 4月25日12:27:47 1996 46
 表1

 对所有中心反射对所有偏心反射(不正常情况)S(定相力)
缺乏闭合误差以使显示的分辨率最大化
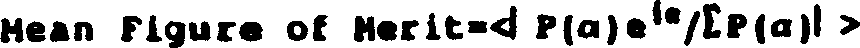 其中的P(a)为相几率e外层中数据完全度(completeness),(2.9-2.8)为原始数据,而(3.1-3.0)为两种衍生数据表2肽1-EBP1 肽1-EBP2 肽1-EBP2 肽2-EBP1 肽1-肽2Glyp9O-Met150N Tyrp4OH-Ser92N Glyp9O-Met150N Tyrp4OH-Ser92N Tyrp4O-Cysp6NProp10O-Thr151N Prop10O-Thr151N Tyrp4N-Cysp6OProp10O-Thr151Oγ Prop10O-Thr151Oγ1 Cysp6O-Tyrp4NLeup11O-Ser152N Leup11O-Ser152N Cysp6N-Tyrp4OLeup11O-Ser152Oγ Leup11O-Ser152Oγ
Claims (6)
1.一种用计算机辅助鉴定红细胞生成素的潜在模拟物的方法,使用包括处理器、数据存贮系统、输入设备和输出设备的已编程的计算机,包括以下步骤:
(a)当肽GGTYSCHFGPLTWVCKPQGG与包括红细胞生成素受体中的氨基酸1至225的红细胞生成素受体的一部分共结晶时,把包括所述肽中的一小组原子的三维坐标数据经所述的输入设备而输入已编程的计算机,从而产生一套标准数据组;
(b)用所述的处理器,将所述的标准数据组与贮存于所述计算机的数据存贮系统中的化学结构的计算机数据库进行比较;
(c)用计算机方法从所述的数据库中筛选出含有与所述标准数据组结构类似的部分的化学结构;
(d)将筛选出的含有与所述标准数据组结构类似的部分的化学结构输出到所述的输出装置。
2.一种用计算机辅助鉴定红细胞生成素的潜在模拟物的方法,使用包括处理器、数据存贮系统、输入设备和输出设备的已编程的计算机,包括以下步骤:
(a)当肽GGTYSCHFGPLTWVCKPQGG与包括红细胞生成素受体中的氨基酸1至225的红细胞生成素受体的一部分共结晶时,把包括所述肽中的一小组原子的三维坐标数据经所述的输入设备而输入已编程的计算机,从而产生一套标准数据组;
(b)用计算机方法构建含有与所述标准数据组结构类似的部分的化学结构模型;
(c)将构建的模型输出到所述的输出装置。
3.具有用权利要求1的方法筛选出的化学结构的化合物,所述的化合物为EPO的模拟物。
4.权利要求3的化合物,其中所述的化合物不是肽。
5.权利要求3的化合物,其中所述的化合物为肽。
6.权利要求5的化合物,其中所述的肽具有15个或更少的氨基酸。
Applications Claiming Priority (2)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US08/641,071 | 1996-04-26 | ||
| US08/641,071 US5835382A (en) | 1996-04-26 | 1996-04-26 | Small molecule mimetics of erythropoietin |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| CN1223732A CN1223732A (zh) | 1999-07-21 |
| CN1114876C true CN1114876C (zh) | 2003-07-16 |
Family
ID=24570833
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| CN97195838A Expired - Fee Related CN1114876C (zh) | 1996-04-26 | 1997-04-28 | 用计算机辅助鉴定红细胞生成素的潜在模拟物的方法及由该方法筛选出化合物 |
Country Status (13)
| Country | Link |
|---|---|
| US (4) | US5835382A (zh) |
| EP (1) | EP1012741B1 (zh) |
| JP (1) | JP2000509393A (zh) |
| KR (1) | KR100458755B1 (zh) |
| CN (1) | CN1114876C (zh) |
| AT (1) | ATE397251T1 (zh) |
| AU (1) | AU709679B2 (zh) |
| CA (1) | CA2251842C (zh) |
| DE (1) | DE69738739D1 (zh) |
| IL (1) | IL126566A (zh) |
| NZ (2) | NZ332181A (zh) |
| RU (1) | RU2200347C2 (zh) |
| WO (1) | WO1997041526A1 (zh) |
Families Citing this family (42)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| KR100470180B1 (ko) | 1995-06-15 | 2005-02-04 | 크루셀 홀란드 비.브이. | 유전자 요법에 사용할 수 있는 인간의 재조합아데노바이러스 패키징 시스템 |
| US5835382A (en) * | 1996-04-26 | 1998-11-10 | The Scripps Research Institute | Small molecule mimetics of erythropoietin |
| US6221608B1 (en) * | 1997-01-22 | 2001-04-24 | Ortho Pharmaceutical Corporation | Methods for identifying erythropoietin receptor binding protein |
| DE69935785T2 (de) * | 1998-04-20 | 2007-12-27 | Ortho-Mcneil Pharmaceutical, Inc. | Substitutierte aminosaeuren als erythropoietin-mimetica |
| AUPP660698A0 (en) | 1998-10-21 | 1998-11-12 | University Of Queensland, The | A method of protein engineering |
| US7345019B1 (en) | 1999-04-13 | 2008-03-18 | The Kenneth S. Warren Institute, Inc. | Modulation of excitable tissue function by peripherally administered erythropoietin |
| US7410941B1 (en) | 1999-04-13 | 2008-08-12 | The Kenneth S. Warren Institute, Inc. | Methods for treatment of neurodegenerative conditions by peripherally administered erythropoietin |
| US6855544B1 (en) * | 1999-04-15 | 2005-02-15 | Crucell Holland B.V. | Recombinant protein production in a human cell |
| US20050164386A1 (en) * | 1999-04-15 | 2005-07-28 | Uytdehaag Alphonsus G. | Overexpression of enzymes involved in post-translational protein modifications in human cells |
| US20050170463A1 (en) * | 1999-04-15 | 2005-08-04 | Abraham Bout | Recombinant protein production in permanent amniocytic cells that comprise nucleic acid encoding adenovirus E1A and E1B proteins |
| US7604960B2 (en) * | 1999-04-15 | 2009-10-20 | Crucell Holland B.V. | Transient protein expression methods |
| US8236561B2 (en) * | 1999-04-15 | 2012-08-07 | Crucell Holland B.V. | Efficient production of IgA in recombinant mammalian cells |
| US7297680B2 (en) * | 1999-04-15 | 2007-11-20 | Crucell Holland B.V. | Compositions of erythropoietin isoforms comprising Lewis-X structures and high sialic acid content |
| US7527961B2 (en) * | 1999-11-26 | 2009-05-05 | Crucell Holland B.V. | Production of vaccines |
| US7192759B1 (en) * | 1999-11-26 | 2007-03-20 | Crucell Holland B.V. | Production of vaccines |
| US7521220B2 (en) | 1999-11-26 | 2009-04-21 | Crucell Holland B.V. | Production of vaccines |
| US20020037832A1 (en) * | 2000-05-02 | 2002-03-28 | Soren Nielsen | Use of alpha-MSH and EPO for preventing or treating ischemic conditions |
| AUPR030900A0 (en) | 2000-09-22 | 2000-10-12 | Queensland University Of Technology | Growth factor complex |
| JP2004532972A (ja) | 2000-12-09 | 2004-10-28 | ザ リージェンツ オブ ザ ユニバーシティ オブ カリフォルニア | 転移rnaおよびモデルメッセンジャーrnaに接触している機能的リボソーム複合体のx線結晶構造ならびにその使用方法 |
| US7767643B2 (en) * | 2000-12-29 | 2010-08-03 | The Kenneth S. Warren Institute, Inc. | Protection, restoration, and enhancement of erythropoietin-responsive cells, tissues and organs |
| PA8536201A1 (es) | 2000-12-29 | 2002-08-29 | Kenneth S Warren Inst Inc | Protección y mejoramiento de células, tejidos y órganos que responden a la eritropoyetina |
| US20030072737A1 (en) * | 2000-12-29 | 2003-04-17 | Michael Brines | Tissue protective cytokines for the protection, restoration, and enhancement of responsive cells, tissues and organs |
| US6531121B2 (en) | 2000-12-29 | 2003-03-11 | The Kenneth S. Warren Institute, Inc. | Protection and enhancement of erythropoietin-responsive cells, tissues and organs |
| JP4480398B2 (ja) * | 2001-12-07 | 2010-06-16 | クルセル ホランド ベー ヴェー | ウイルス、ウイルス分離株及びワクチンの製造方法 |
| US7300915B2 (en) | 2002-06-05 | 2007-11-27 | The Regents Of The University Of California | Use of erythropoietin and erythropoietin mimetics for the treatment of neuropathic pain |
| US20040122216A1 (en) * | 2002-07-01 | 2004-06-24 | Jacob Nielsen | Recombinant tissue protective cytokines and encoding nucleic acids thereof for protection, restoration, and enhancement of responsive cells, tissues, and organs |
| AU2003900481A0 (en) | 2003-02-05 | 2003-02-20 | Queensland University Of Technology | Synthetic modulators of cell migration and growth |
| US20100143442A1 (en) | 2003-02-05 | 2010-06-10 | Queensland University Of Technology | Growth factor complexes and modulation of cell migration and growth |
| KR101183770B1 (ko) | 2003-05-09 | 2012-09-17 | 크루셀 홀란드 비.브이. | E1-불멸화된 세포의 배양물 및 이로부터 생성 수율을 증가시키기 위한 동일물의 배양 방법 |
| DE602004027483D1 (de) * | 2003-05-23 | 2010-07-15 | Crucell Holland Bv | Herstellung von rekombinanten igm in den per.c6 zellen |
| JP2007517769A (ja) * | 2003-09-29 | 2007-07-05 | ウォーレン ファーマシューティカルズ,インコーポレーテッド | 敗血症および癒着形成の治療および予防のための組織保護性サイトカイン |
| EP1673102A1 (en) * | 2003-10-17 | 2006-06-28 | Crucell Holland B.V. | Treatment and prevention of decubitus |
| WO2006063415A1 (en) | 2004-12-17 | 2006-06-22 | Monash University | Regulation of metalloprotease cleavage of cell surface proteins |
| RU2285300C1 (ru) * | 2005-02-02 | 2006-10-10 | ГУ Научно-исследовательский институт фармакологии Томского научного центра Сибирского отделения Российской академии медицинских наук (НИИ фармакологии ТНЦ СО РАН) | Способ коррекции нарушений эритропоэза при экспериментальной гипоксии |
| WO2008057537A2 (en) * | 2006-11-08 | 2008-05-15 | Maine Medical Center Research | System and method for identifying erythropoietin-responsive genes |
| EP2121017A2 (en) * | 2006-12-19 | 2009-11-25 | Nokad | Method for inhibiting the expression of endogenous erythropoietin (epo) |
| US20100261155A1 (en) * | 2007-06-06 | 2010-10-14 | Nationwide Children's Hospital, Inc. | Methods and compositions relating to viral fusion proteins |
| CN101978266A (zh) * | 2008-01-04 | 2011-02-16 | 拜尔特菲克斯有限公司 | 用于非共价增强受体结合的方法和组合物 |
| NZ621196A (en) | 2008-01-22 | 2015-08-28 | Araim Pharmaceuticals Inc | Tissue protective peptides and peptide analogs for preventing and treating diseases and disorders associated with tissue damage |
| EP2401302A4 (en) | 2009-02-24 | 2013-10-09 | Alexion Pharma Inc | ANTIBODIES CONTAINING TPO / EPO MIMETIC THERAPEUTIC PEPTIDES |
| EP2253715A1 (en) | 2009-05-14 | 2010-11-24 | RWTH Aachen | New targets for cancer therapy and/or diagnosis |
| CN102725308A (zh) | 2009-11-30 | 2012-10-10 | 昆士兰技术大学 | 纤连蛋白:生长因子嵌合物 |
Family Cites Families (14)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4674066A (en) | 1983-02-18 | 1987-06-16 | Houghton Mifflin Company | Textual database system using skeletonization and phonetic replacement to retrieve words matching or similar to query words |
| US5265030A (en) * | 1990-04-24 | 1993-11-23 | Scripps Clinic And Research Foundation | System and method for determining three-dimensional structures of proteins |
| US5292654A (en) * | 1990-12-13 | 1994-03-08 | Whitehead Institute For Biomedical Research | Mutant EPO receptor and uses therefor |
| US5331573A (en) * | 1990-12-14 | 1994-07-19 | Balaji Vitukudi N | Method of design of compounds that mimic conformational features of selected peptides |
| DE69231467T2 (de) * | 1991-05-10 | 2001-01-25 | Genentech, Inc. | Auswählen von agonisten und antagonisten von liganden |
| WO1993001484A1 (en) * | 1991-07-11 | 1993-01-21 | The Regents Of The University Of California | A method to identify protein sequences that fold into a known three-dimensional structure |
| US5386507A (en) * | 1991-07-18 | 1995-01-31 | Teig; Steven L. | Computer graphics system for selectively modelling molecules and investigating the chemical and physical properties thereof |
| US5581476A (en) * | 1993-01-28 | 1996-12-03 | Amgen Inc. | Computer-based methods and articles of manufacture for preparing G-CSF analogs |
| US5453937A (en) * | 1993-04-28 | 1995-09-26 | Immunex Corporation | Method and system for protein modeling |
| CN1125401A (zh) * | 1993-04-29 | 1996-06-26 | 艾博特公司 | 促红细胞生成素类似物组合物和方法 |
| US5434796A (en) * | 1993-06-30 | 1995-07-18 | Daylight Chemical Information Systems, Inc. | Method and apparatus for designing molecules with desired properties by evolving successive populations |
| WO1995011487A1 (en) | 1993-10-22 | 1995-04-27 | Fdc, Inc. | Database using table rotation and bimapped queries |
| US5767078A (en) * | 1995-06-07 | 1998-06-16 | Johnson; Dana L. | Agonist peptide dimers |
| US5835382A (en) * | 1996-04-26 | 1998-11-10 | The Scripps Research Institute | Small molecule mimetics of erythropoietin |
-
1996
- 1996-04-26 US US08/641,071 patent/US5835382A/en not_active Expired - Lifetime
-
1997
- 1997-04-28 AT AT97922545T patent/ATE397251T1/de not_active IP Right Cessation
- 1997-04-28 NZ NZ332181A patent/NZ332181A/xx not_active IP Right Cessation
- 1997-04-28 CA CA002251842A patent/CA2251842C/en not_active Expired - Fee Related
- 1997-04-28 CN CN97195838A patent/CN1114876C/zh not_active Expired - Fee Related
- 1997-04-28 JP JP9539178A patent/JP2000509393A/ja not_active Ceased
- 1997-04-28 IL IL126566A patent/IL126566A/en not_active IP Right Cessation
- 1997-04-28 EP EP97922545A patent/EP1012741B1/en not_active Expired - Lifetime
- 1997-04-28 WO PCT/US1997/007218 patent/WO1997041526A1/en not_active Ceased
- 1997-04-28 RU RU98121308/14A patent/RU2200347C2/ru not_active IP Right Cessation
- 1997-04-28 KR KR10-1998-0708538A patent/KR100458755B1/ko not_active Expired - Fee Related
- 1997-04-28 DE DE69738739T patent/DE69738739D1/de not_active Expired - Fee Related
- 1997-04-28 AU AU28187/97A patent/AU709679B2/en not_active Ceased
-
2001
- 2001-08-09 NZ NZ51345401A patent/NZ513454A/xx not_active IP Right Cessation
-
2005
- 2005-10-17 US US11/252,390 patent/US7272508B2/en not_active Expired - Fee Related
-
2007
- 2007-09-18 US US11/857,344 patent/US20090119019A1/en not_active Abandoned
-
2009
- 2009-10-23 US US12/605,308 patent/US20100250600A1/en not_active Abandoned
Also Published As
| Publication number | Publication date |
|---|---|
| US7272508B2 (en) | 2007-09-18 |
| IL126566A (en) | 2006-12-31 |
| US20060064252A1 (en) | 2006-03-23 |
| AU709679B2 (en) | 1999-09-02 |
| CA2251842C (en) | 2008-09-09 |
| DE69738739D1 (de) | 2008-07-10 |
| AU2818797A (en) | 1997-11-19 |
| US20100250600A1 (en) | 2010-09-30 |
| KR20000065004A (ko) | 2000-11-06 |
| KR100458755B1 (ko) | 2005-06-20 |
| EP1012741B1 (en) | 2008-05-28 |
| WO1997041526A1 (en) | 1997-11-06 |
| NZ513454A (en) | 2004-12-24 |
| JP2000509393A (ja) | 2000-07-25 |
| CN1223732A (zh) | 1999-07-21 |
| US5835382A (en) | 1998-11-10 |
| ATE397251T1 (de) | 2008-06-15 |
| CA2251842A1 (en) | 1997-11-06 |
| EP1012741A4 (en) | 2001-09-12 |
| EP1012741A1 (en) | 2000-06-28 |
| NZ332181A (en) | 2000-05-26 |
| RU2200347C2 (ru) | 2003-03-10 |
| US20090119019A1 (en) | 2009-05-07 |
| IL126566A0 (en) | 1999-08-17 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| KR100458755B1 (ko) | 컴퓨터를이용한잠재적인에리트로포이에틴유사물질동정방법 | |
| Livnah et al. | Functional mimicry of a protein hormone by a peptide agonist: the EPO receptor complex at 2.8 Å | |
| Yoon et al. | Charged residues dominate a unique interlocking topography in the heterodimeric cytokine interleukin‐12 | |
| McDonald et al. | Crystal structure of dimeric human ciliary neurotrophic factor determined by MAD phasing. | |
| Finzel et al. | Crystal structure of recombinant human interleukin-1β at 2· 0 Å resolution | |
| Syed et al. | Efficiency of signalling through cytokine receptors depends critically on receptor orientation | |
| Lubkowski et al. | The structure of MCP-1 in two crystal forms provides a rare example of variable quaternary interactions | |
| Rossjohn et al. | Structure of the activation domain of the GM-CSF/IL-3/IL-5 receptor common β-chain bound to an antagonist | |
| US20080025983A1 (en) | Methods of screening based on the EGF receptor crystal structure | |
| JP2005517227A (ja) | サイトカイン受容体 | |
| Schreuder et al. | Refined crystal structure of the interleukin‐1 receptor antagonist: presence of a disulfide link and a cis‐proline | |
| Kosinová et al. | Insight into the structural and biological relevance of the T/R transition of the N-terminus of the B-chain in human insulin | |
| Silvian et al. | Artemin crystal structure reveals insights into heparan sulfate binding | |
| Reidhaar-Olson et al. | Identification of residues critical to the activity of human granulocyte colony-stimulating factor | |
| Mott et al. | The solution structure of the F42A mutant of human interleukin 2 | |
| KR20030074788A (ko) | 감소된 면역원성을 갖는 개질 렙틴 | |
| US7208147B2 (en) | Modified granulocyte macrophage colony stimulating factor (GM-CSF) with reduced immunogenicity | |
| WO2002069997A1 (en) | Modified protamine with reduced immunogenicity | |
| EP1360201A1 (en) | Modified keratinocyte growth factor (kgf) with reduced immunogenicity | |
| US20030068300A1 (en) | Crystalline IL-6 and models of the molecular structure of IL-6 | |
| AU1942700A (en) | Small molecule mimetics of erythropoietin | |
| Clore et al. | Structural Studies of InterIeukin-1β, Interleukin-4, and lnterleukin-8 | |
| AU6305199A (en) | Small molecule mimetics of erythropoietin | |
| AU2002249180A1 (en) | Modified keratinocyte growth factor (KGF) with reduced immunogenicity | |
| AU2002242715A1 (en) | Modified protamine with reduced immunogenicity |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| C06 | Publication | ||
| PB01 | Publication | ||
| C10 | Entry into substantive examination | ||
| SE01 | Entry into force of request for substantive examination | ||
| C14 | Grant of patent or utility model | ||
| GR01 | Patent grant | ||
| C17 | Cessation of patent right | ||
| CF01 | Termination of patent right due to non-payment of annual fee |
Granted publication date: 20030716 Termination date: 20110428 |