-
Die Erfindung betrifft die Synthese
von Xanthangummi mit Xanthomonas campestris und insbesondere Verfahren
zur Verbesserung der Synthese durch Modifikation des natürlichen
Organismus.
-
Eine Anzahl von Mikroorganismen produzieren
extrazelluläre
Polysaccharide, die auch als Exopolysaccharide oder EPS bekannt.
Das als Xanthan bekannte Exopolysaccharid wird vom Bakterium Xanthormonas
campestris produziert. Der Stamm X. camestris pv campestris ist
ein direkter Auslöser
von Schwarzfäulnis bei
Kruziferen.
-
Xanthan selbst ist geeignet als ein
Spezialitätenpolymer
für eine
wachsende Anzahl von wirtschaftlichen Anwendungen. Der Einsatz von
Xanthan als Handelsprodukt ist ein Ergebnis von erfolgreichen Screening
Bemühungen
des Northern Regional Research Center, geeignete wasserlösliche Polysaccharidprodukte zu
finden, um existierende Gummen aus Pflanzen und Algen zu ersetzen.
Das NRRL X. campestris NRRL B1459, ein Stamm, der ein Polymer produziert,
welches drei wünschenswerte
Eigenschaften hat: (1) hohe Viskosität bei niedriger Konzentration;
(2) Pseudoplastizität
und (3) Unempfindlichkeit gegen eine großen Bereich der Temperatur,
des pH-Wertes und
der Elektrolytkonzentration. Aufgrund seiner speziellen biologischen
Eigenschaften wird Xanthan in Lebensmitteln, Kosmetika, Pharmazeutika,
Papier, Lacken, Textilien und Klebstoffen sowie darüber hinaus
in der Öl-
und Gasindustrie eingesetzt. Außerdem
ist das Polymer in einfacher Weise durch Fermentation aus D-Glucose
herzustellen. Die Synthese von Xanthan ist vermutlich ähnlich der Synthese
von Exopolysacchariden durch Gram-negative Bakterien wie zum Beispiel
die Spezien Rhizobium, Pseudomonas, Klebsiella und Escherichia.
Der Gang der Synthese kann in drei Teile eingeteilt werden: (1)
Aufnahme von einfachen Zuckern und deren Umwandlung in nukleotide
Derivate; (2) den Zusammenbau von anhängenden Pentasacchariduntereinheiten
an einem Isopentylpyrophosphatträger
und (3) die Polymerisation von Pentasaccharid Wiederholungseinheiten
und deren Sekretion. Der Vergleich mit einem fortgeschrittenen molekulargenetischen
Verständnis
der Synthese von Colansäure
mit E. coli oder der Synthese von Alginate mit P. aerugi nosa ergab
wenig Wissen über
die Gene, Enzyme oder Mechanismen, die die Synthese von Xanthan
durch X. campestris steuern.
-
Xanthangummi wird normalerweise hergestellt
durch Fermentation von X. campestris mit Glucose oder Maisöl als Hauptkohlenstoffquelle.
Obwohl es auch möglich
ist, die Glucose und Galactose in hydrolierter Käsemolke in Xanthan zu überführen, nutzen
wilde Stämme
von X. campestris Lactose nur in geringem Umfang, und die Molke
muss zuerst enzymatisch mit Lactose oder β-Galactosidase hydolysiert werden.
Es gibt einige Vorschläge,
dass die β-Galactosidase
von X. campestris eine niedrige Affinität zu Lactose hat, wodurch die
geringe Utilisierung von unhydrolyzierter Lactose erklärt wird.
Es wurden Versuche angestellt, einen Stamm von X. campestris herzustellen,
der Lactose besser utilisiert. Exogene lac-Gene wurden in X. campestris überführt, wobei
Transposon Tn951 eingesetzt wurde, welches wiederum in das mobilisierbare
Plasmid RP1 mit breitem Wirtsbereich eingefügt wurde. Jedoch waren das
Plasmid und deshalb die lac-Gene in Abwesenheit eines plasmidselektiven
Antibiotikums nicht stabil: (Walsh et al. Appl. Environ. Microbiol.,
1984, 47(2): 253-25). Bei anderen Untersuchungen wurde ein spontanes
Derivat von X. compestris B1459 isoliert, welches unhydrolysierte
Lactose in Molke zu Xanthangummi umwandeln konnte. Jedoch war die
Natur der Mutation unbekannt; der Stamm erwies sich für die Xanthanproduktion
als nicht stabil und verlor innerhalb von vierzig Generationen unter
nicht selektierenden Bedingungen beträchtlich an Produktivität.
-
Andere genetische Manipulationen
von X. compestris sind wünschenswert.
Beispielsweise werden mitunter unerwünschte Enzyme produziert, die
das Xanthanprodukt verunreinigen und die Eignung von Xanthangummi
auf mehr einengen als es sonst möglich
wäre.
-
Dementsprechend wäre ein besseres Verständnis der
genetischen Kontrolle der Xanthanproduktion durch X. campestris
nützlich,
um die Produktivität
von X. campestris bei der Xanthanproduktion zu verbessern.
-
Eine neuere Arbeit über das
molekulare Klonieren von Genen umfasste die Produktion von Xanthan (Barrere
et al., Int. J. Biol. Macromol. (1986) 8: 372–374). Eine Studie zeigte,
dass eine Mutation, die die Synthese von Exopolysaccharid blockiert
und die Nodulation von Erbsen mit Rizobium leguminsarum verhinderte, durch
klonierte DNA aus dem Phytopathogen Xanthomonas korrigiert wurde,
siehe Borthakur et al., Mol. Gen. Genet. (1986) 203: 320–323. Die
Produktion von Xanthan mit Xanthomonas campestrist, die Eigenschaften von
Xanthan und wirtschaftliche Anwendungen von Xanthan werden bestreben
in Rogovin et al., J. Biochem. Microbiol. Technol. Eng. (1961) 3:
51–63
und Kennedy et al., 1984, "Production,
properties, and applications of xanthan", Seiten 319–371 in M. E. Bushell (Hrsg.),
Progress in Industrial Microbiology, Band 19, Elsevier, Amsterdam.
-
Nach der Einreichung der US-Anmeldung
mit der Serial Number 038 302 am 14. April 1987 sind eine Reihe
von Arbeiten erschienen. Diese umfassen Harding et al., J. Bacteriol.
(1987) 169: 2854–2861,
der die genetischen und Physikalischen Analysen eines Genklusters
beschreibt, welches für
die Biosynthese von Xanthangummi in X. campestris wesentlich ist.
Die europäische
Patentanmeldung
EP
0 233 019 A2 (eingereicht am 29. Januar 1987) beschreibt
ein rekombinantes DNA-Plasmid für
die Synthese von Xanthangummi. Thorne et al., J. Bacteriol. (1987)
169: 3593–3600
beschreibt das Kluster von Mutationen, die die Synthese von Xanthangummi
durch X. campestris blockieren.
-
Die Erfindung stellt ein Verfahren
zu Verbesserung der Produktion von Xanthangummi zur Verfügung, bei
dem in einem Kulturmedium ein Xanthomonas campestris-Stamm kultiviert
wird, der eine Xanthan erhöhende
Modifikation aufweist, wobei die Modifikation eine exprimierbare
exogene genetische Information ist, die die Synthese von Xanthan
steuert und bei dem Xanthan aus dem Kulturmedium entfernt wird.
Es wird ein Abschnitt der chromosomalen DNA von Xanthomonas ist
identifiziert, der die genetische Information enthält, die die
Synthese von Xanthan steuert; dieser erlaubt den Einsatz zahlreicher
Arbeitsverfahren für
die Erhöhung der
Xanthanproduktion, beispielsweise liefert gibt er durch die Wirkung
einer Dosierung Mehrfachkopien zur Verbesserung der Xanthanproduktion
und einen indizierbaren Promoter oder ein anderes Verfahren der
genetischen Steuerung, um die Xanthanproduktion von der konstitutiven
Proteinsynthese zu entkoppeln.
-
Kurzbeschreibung
der Zeichnungen
-
Die nachfolgende Beschreibung von
speziellen Aufrührungsformen
dient dem besseren Verständnis der
Erfindung und ist zusammen mit den beigefügten Zeichnungen zu betrachten,
die einen Teil der Beschreibung bilden; es zeigen:
-
1:
eine Zusammenstellung von drei körperlichen
Karten für
Insertionen der X. campestris-DNA in den Vektor pRK311, der Komlementierungsgruppen
zeigt. Die mit "R/H" bezeichnete Linie
zeigt die Reihenfolge und Position von Restriktionsschnittstellen
für EcoRI
und HindIII-Enyzmen, die aus den überlappenden Karten abgeleitet
wurden, die für
individuelle klonierte Inserts erhalten wurden. Klammern ( )
am Ende der klonierten Karten zeigen, dass es nicht möglich war,
ein Ende, welches durch Schnitt innerhalb des klonierten Inserts erzeugt
war, von dem Schnitt in der benachbarten mehrfachen Klonierungsstelle
zu unterscheiden. Die Positionen der Abmessungskarte für Xgs-Mutationen
sind oberhalb der körperlichen
Karten angegeben. Ungeordnete loci werden von geschweiften Klammern,
{ }, eingeschlossen.
-
2:
einen Graphen, der den zeitlichen Verlauf der Akkumulation von Xanthan
durch wilde Stämme X59
zeigt, die Mehrfachkopien der genetischen Information tragen, die
die Synthese von Xanthan steuert. Rekombinante Plasmide, die Inserts
geklonter X. compestris-DNA enthalten, die die Xanthansynthese wiederherstellen,
sind durch folgende Symbole angegeben: • S59; Δ X59pRK311;
X59c45; ☐ X59c9,
o X59c1;
X59c31. Darstellung A
zeigt die optische Dichte bei unterschiedlichen Zeiten des Zellwachstums,
wogegen Darstellung B die Akkumulation von Xanthan zeigt. Die obere
Kurve in Darstellung A repräsentiert
vier Kulturen. In Darstellung B bedeutet die ausgezogene Linie X59c45,
die gestrichelte X59pRK311 und die gepunktete X59c31.
-
3:
eine Restriktionskarte, die die subklonierten Fragmente des c8-Fragments
der in 1 dargestellten
X. campestris-DNA zeigt. Abkürzungen:
B Bam-HI; BgI BgIII;
H HindIII; R EcoRI.
-
4:
einen Graphen mit vier Darstellungen, die vier unterschiedliche
Kurven von drei Kontrollkonturen im Vergleich zu einem gegen Rifampicin
unempfindlichen Stamm, X59.
-
5:
eine schematisches Diagramm, welches die Konstruktion eines Lac+-Integrationsvektors
zeigt. Die kreisförmigen
genetischen Karten sind ungefähr
maßstabsgerecht.
Das Plasmid pSY1181 ist eine Integrationsvektor für den allgemeinen
Einsatz und trägt
einen DNA-Segment (c1), welches identisch mit der Chromosonaensequenz
von X. campestris ist. Das Plasmid pSY1232 trägt zusätzlich die lac-Gene von Tn951.
-
6 Einen
Graphen; der die Viskosität
von Xanthan enthaltendem Material zeigt, welches aus Glucose, Lactose
oder geklärter
Molke hergestellt wurde. Es wurden Lösungen von Xanthangummi mit
bekannten Konzentrationen und unter Ausschluss von Wasser, Asche
und Protein hergestellt. Die Viskositäten bei unterschiedlichen Schergeschwindigkeiten
wurden gemessen und die Werte von einer Schergeschwindigkeit von 1,32
s–1 aufgetragen.
-
Symbole, Stämme und Wachstums- oder Verarbeitungsbedingen: • X59-1232 (Lac
–),
Glucose;
X59-1232 (Lac
+), Lactose;
X59-1232 (Lac
+), geklärte
Molke; ⊟ X59-1232
(Lac
+), Lactose ohne Zusatz von geklärter Molke
bei der Ernte; ⊞ X59-1232
(Lac
+), Lactose mit Zusatz von geklärter Molke
bei der Ernte.
-
Beschreibung
von speziellen Ausführungsformen
-
Untersuchungen in den Labors der
Erfinder haben gezeigt, dass eine Anzahl von Modifikationen zu Verfügung steht,
mit denen die Produktion von Xanthangummi aus Stämmen von Xanthomonas campestris verbessert
werden kann. Drei spezielle genetische Modifikationen, die die Xanthanproduktion
verbessern können,
sind Mutationen, die zu Rifampicinresistenz führen, Mutationen, die zu Bacitracinresistenz
führen
und die Anwesenheit von exogenen genetischen Informationen, die
die Synthese von Xanthan steuern und in einem Stamm von Xanthomonas
campestris eingebaut sind.
-
Die ersten zwei dieser Methoden,
die beide den Einsatz eines Mutantenstammes mit Resistenz gegen ein
Antibiotikum einsetzen, können
heute in einfacher Weise durchgeführt werden, weil die Beziehung
zwischen Antibiotikaresistenz und Xanthanproduktion erkannt worden
ist; dies ist offenbar und wird beansprucht in EP-A-287 363, zu der
die vorliegende Anmeldung eine Teilanmeldung darstellt. Die vorliegende
Anmeldung betrifft die dritte Methode.
-
Diese dritte Methode zur Verbesserung
der Xanthanproduktion umfasst den Einsatz von bisher nicht beschriebenen
exogenen genetischen Informationen, die die Synthese von Xanthan
steuern. Es wurden spezielle Bereiche der chromosomalen DNA von
Xanthomonas identifiziert, die die Synthese von Xanthan steuern. 1 ist eine Chromosomenkarte,
die die Information über
die Restriktionsstelle zeigt, die zur Identifizierung der geeigneten
Sequenzen geeignet ist.
-
Gemäß dem Budapester Vertrag zur
internationalen Anerkennung über
die Hinterlegung von Mikroorganismen für die Zwecke des Patentanmeldeverfahrens
wurden bei der American Type Culture Collection, Rockville, Maryland,
USA, drei genetische Informationen hinterlegt (10. April 1987).
Die drei Hinterlegungen sind E. coli-Stämme,
die (unabhängig
voneinander) die drei in 1 angegebenen
genetischen Segmente enthalten. Den Hinterlegungen wurden die Hinterlegungsnummern
ATCC 67 386, ATCC 67 387 und ATCC 67 388 zugewiesen.
-
Die genetische Information von X.
camgestris kann auf viele Arten angewandt werden. Es können Plasmide
konstruiert werden, die exogene genetische Information enthalten,
die die Synthese von Xanthan steuert, und die Einführung der
genetischen Information in einen X, campestris-Wirt kann mit einem
Donorstamm erfolgen, der ein Plasmid mit der gewünschten genetischen Information
in einem triparentalen Kreuzungsschema enthält, um die genetische Information
auf X. camestris zu übertragen.
Geeignete Vektoren für die
Konjugation sind auch eine Vielzahl von Plasmiden, die einen breiten
Wirtsbereich zeigen. Beispielsweise können Plasmide der IncP-Gruppe,
die RK2 enthalten, und ihre Derivate pRK290, pLAFR1 und pRK311 und Plasmide
der IncQ-Gruppe, die RSF1010 und dessen Derivat pMMb24 eingesetzt
werden. Literaturstellen, die diese Plasmide beschreiben, sind z.B.
Ditta et al, Plasmid (1985) 13: 149–153 (Plasmide RK2, pRK290
und pRK311); Friedman et al, Gene (1982) 18: 289–296 (pLAFRI) und Bagdasarina
et al, Gene (1983) 26: 273–282 (pMMb24).
Beispielsweise können
E. coli-Donorzellen, die die genetische Information auf einem Plasmid
enthalten, E. coli-HB101-Helferzellen, die das Plasmid pRK2013 enthalten,
und rezipiente X. campestris-Zellen kopiert werden, um die Übertragung
der genetischen Information durch Konjugation auszulösen. Der
Isolierung von rekombinanten Plasmiden, beispielsweise durch Einsatz
eines Markers, der in der Nähe
der zu übertragenden
genetischen Information vorhanden ist, kann eine weitere Reinigung
und nachfolgende Paarung folgen. Mit einem gereinigten Mitglied
der ursprünglichen
Genbibliothek, um die Häufigkeit
bzw. das Vorkommen von Exkonjugaten zu erhöhen, die die exogene genetische
Information enthalten.
-
Einzelne Gene, die spezielle Peptide
oder Kontrollfaktoren kodieren, die bei der Synthese von Xanthan
eingesetzt werden, können
aus der beschriebenen genetischen Information isoliert werden, wobei
Standardverfahren der Technologie rekombinanter DNA eingesetzt werden.
Rekstriktionsendonucleasen können eingesetzt
werden, um das relativ große
Segment der genetischen Information, die die Xanthan-Gene enthalten,
in spezielle identifizierbare Fragmente zu zerschneiden. Diese Fragmente
können
individuelle geklont und identifiziert werden. Individuelle Fragmente
können
in einen neuen Wirt eingesetzt werden, um weitere X. campestris-Stämme mit
größerer Xanthanproduktion
herzustellen. Dementsprechend sind Fragmente der genetischen Information,
die die Synthese von Xanthan steuern, auch nützlich bei der industriellen
Produktion von Xanthan. Die Formulierung „genetische Information, die
die Synthese von Xanthan steuert" bezieht
sich dementsprechend entweder auf die ursprüngliche chromosomale DNA, die
die Xanthansynthese wie beschrieben steuert, oder auf Fragmente
dieser ursprünglichen
chromosomalen DNA, die eine oder mehrere einzelne Gene enthält, mit
denen die Synthese von Xanthan gesteuert werden kann, (z.B. einzelne
Gene, die ein Enzym kodieren, das bei der Xanthansynthese eingesetzt
wird).
-
Spezielle Beispiele, die die Manipulation
des genetischen Materials zeigen, werden in den nachfolgenden Arbeitsbeispielen
angegeben. Es wurden Klone hergestellt, die Fragmente der die Synthese
von Xanthan steuernden genetischen Information enthalten. Die Selektion
dieser Klone gestattete die Isolierung von Stämmen mit besseren Eigenschaften,
wie z.B. größere Viskosität. Das genetische
Material wurde in Kombination mit bekanntem genetischen Material übertragen,
um modifizierte Stämme
herzustellen, die auf bisher nicht verfügbare Weise eingesetzt werden
können.
Beispielsweise wurde das erfindungsgemäße genetische Material zusammen
mit genetischer Information zur Steuerung der Herstellung von Lactase übertragen,
womit ein Stamm erhalten wurde, der für die Herstellung von Xanthangummi
mit Käsemolke
als Substrat besonders geeignet ist.
-
Beispielsweise wurde ein stabiler
rekombinanter Stamm X59-1232 erhalten, der aus Lactose Xanthangummi
von guter Qualität
herstellt, indem die Iac-Gene von TransposonTn951 in das Chromosom
vom X. campestris-Stamm X59 eingeführt wurden. Die erkennbare
Wirksamkeit der Umwandlung von Lactose in Xanthangummi mit diesem
Stamm entsprach der Umwandlung von Glucose in Xanthangummi durch
den Stamm X59, ein Stamm, der hier weiter erörtert wird und die letztere
Umwandlung wirksam durchführt.
Die Viskosiät
der Xanthangummen aus diesen zwei Quellen war äquivalent. Nach mehr als 14
Wachstumsgenerationen ohne positive Selektion auf genetisch verursachte
Eigenschaften war die erkennbare Wirksamkeit der Umwandlung von
Lactose durch den Stamm X59-1232 besser als die von Stamm X59-pGC9114,
ein Stamm, der die lac-Gene Tn951 auf einem mehrfach kopierten Plasmid
(pGC9114) trägt,
wobei dieser Stamm wiederum besser war, als der Stamm X59, dem die
lac-Gene Tn951 fehlen. Die Überlegenheit
von X59-1232 könnten auf
einem stabilen Einbau der lac-Gene in das Chromosom X59-1232 zurückzuführen sein.
-
Die Wirksamkeit der Umwandlung in
Xanthangummi durch X59-1232 für
geklärte
Käsemolke
betrug etwa 90% der von Lactose in Xanthangummi. Dieser Unterschied
von 10% zum theoretischen Wert liegt möglicherweise innerhalb des
experimentellen Fehlers der eingesetzten Messungen.
-
Nach dem Kultivieren eines Xanthomonas-Stamms,
der eine Xanthan verbessernde Modifikation aufweist, wird Xanthan
aus dem Kulturmedium abgetrennt, wobei Verfahren eingesetzt werden,
mit denen dies erzielt werden kann, wie z.B. Standardverfahren,
die bereits industriell eingesetzt werden; siehe beispielsweise Kennedy
et al, supra. und Rogovin et al, supra. Ein einfaches Verfahren
umfasst das Filtrieren ei nes flüssigen Kulturmediums
zur Entfernung von wachsenden Bakterienzellen, den Zusatz von Isopropylalkohol
zum Filtrat zum Ausfällen
der Exopolysaccharide und das Sammeln des Niederschlags auf einem
Filter gefolgt von Trocknen (wahlweise mit Wärme und/oder unter Vakuum).
-
Nach der allgemeinen Beschreibung
der Erfindung ergibt sich ein besseres Verständnis durch die nachfolgenden
detaillierten Beispiele, die lediglich der Erläuterung dienen und nicht als
Beschränkung
der Erfindung zu verstehen sind, soweit dies nicht festgestellt
wird.
-
Experimenteller
Teil
-
Beispiel 1
-
Verwendung von exogener
genetischer Information, die die Synthese von Xanthan steuert
-
Zusammenfassend kann gesagt werden,
dass Mutationen, die die Synthese von Xanthangummi durch Xanthomonas
campestris B1459S-4LII nach der Behandlung mit Ethylmethan-Sulfonat
als nichtmukoide Kolonien isoliert und dazu verwendet wurden, DNA-Fragmente
zu identifizieren, die Xanthangene enthalten. Vollständige Bibliotheken
von DNA-Fragmenten aus wildem X. campestris wurden in E. coli kloniert,
wobei ein Cosmidvektor mit breitem Wirtsbereich eingesetzt wurde,
und dann durch conjugates Kreuzen in jeden Mutantenstamm übertragen.
Klonierte Fragmente, die die Synthese von Xanthangummi wiederherstellten
(Xgs+; Mucoität) wurden charakterisiert nach
Maßgabe
des Restriktionsmusters, der Homologie der DNA-Sequenz und der Komplementation eines
Untersatzes von Xgs–. Es wurde gefunden,
dass Klongruppen, die überlappende homologe
DNA enthielten, spezielle Xgs–-Mutationen komplementierten. Die Ergebnisse
deuten auf ein Clustern der genetischen Loci hin, die bei der Synthese
von Xanthan beteiligt sind. Es wurden auch andere Loci gefunden,
die offensichtlich unverknüpft
waren. Zwei Formen der Komplementation wurden beobachtet. In den meisten
Fällen
wurde gefunden, dass unabhängig
isolierte Cosmidklone, die eine einfache Mutation komplementieren,
teilweise homolog sind. Weniger häufig war die zweite Form der
Komplementation, bei der zwei Cosmidklone, die keine homologen Sequenzen
aufwiesen, den Phänotyp
des Mucoids zu einem einzelnen Mutanten wiederherstellten. In dem
einen Fall, der im Detail studiert wurde, zeigte sich, dass die
Wiederherstellung des Phänotyps
des wilden Mucoids mit homologer Rekombination zwischen einer normal
klonierten DNA zusammenfiel, die auf einem Plasmid und dem chromosomalen
Locus des Mutanten sitzt. Schließlich wurde für die komplementierten
Mutanten und für
das wilde X. campestris, welches Mehrfachkopien der Cosmidklone
trägt,
das Ausmaß der
Wiederherstellung der Xanthansynthese gemessen. Einzelheiten der
experimentellen Methoden und der Ergebnisse werden nachstehend mitgeteilt.
-
Materialien
und Methoden
-
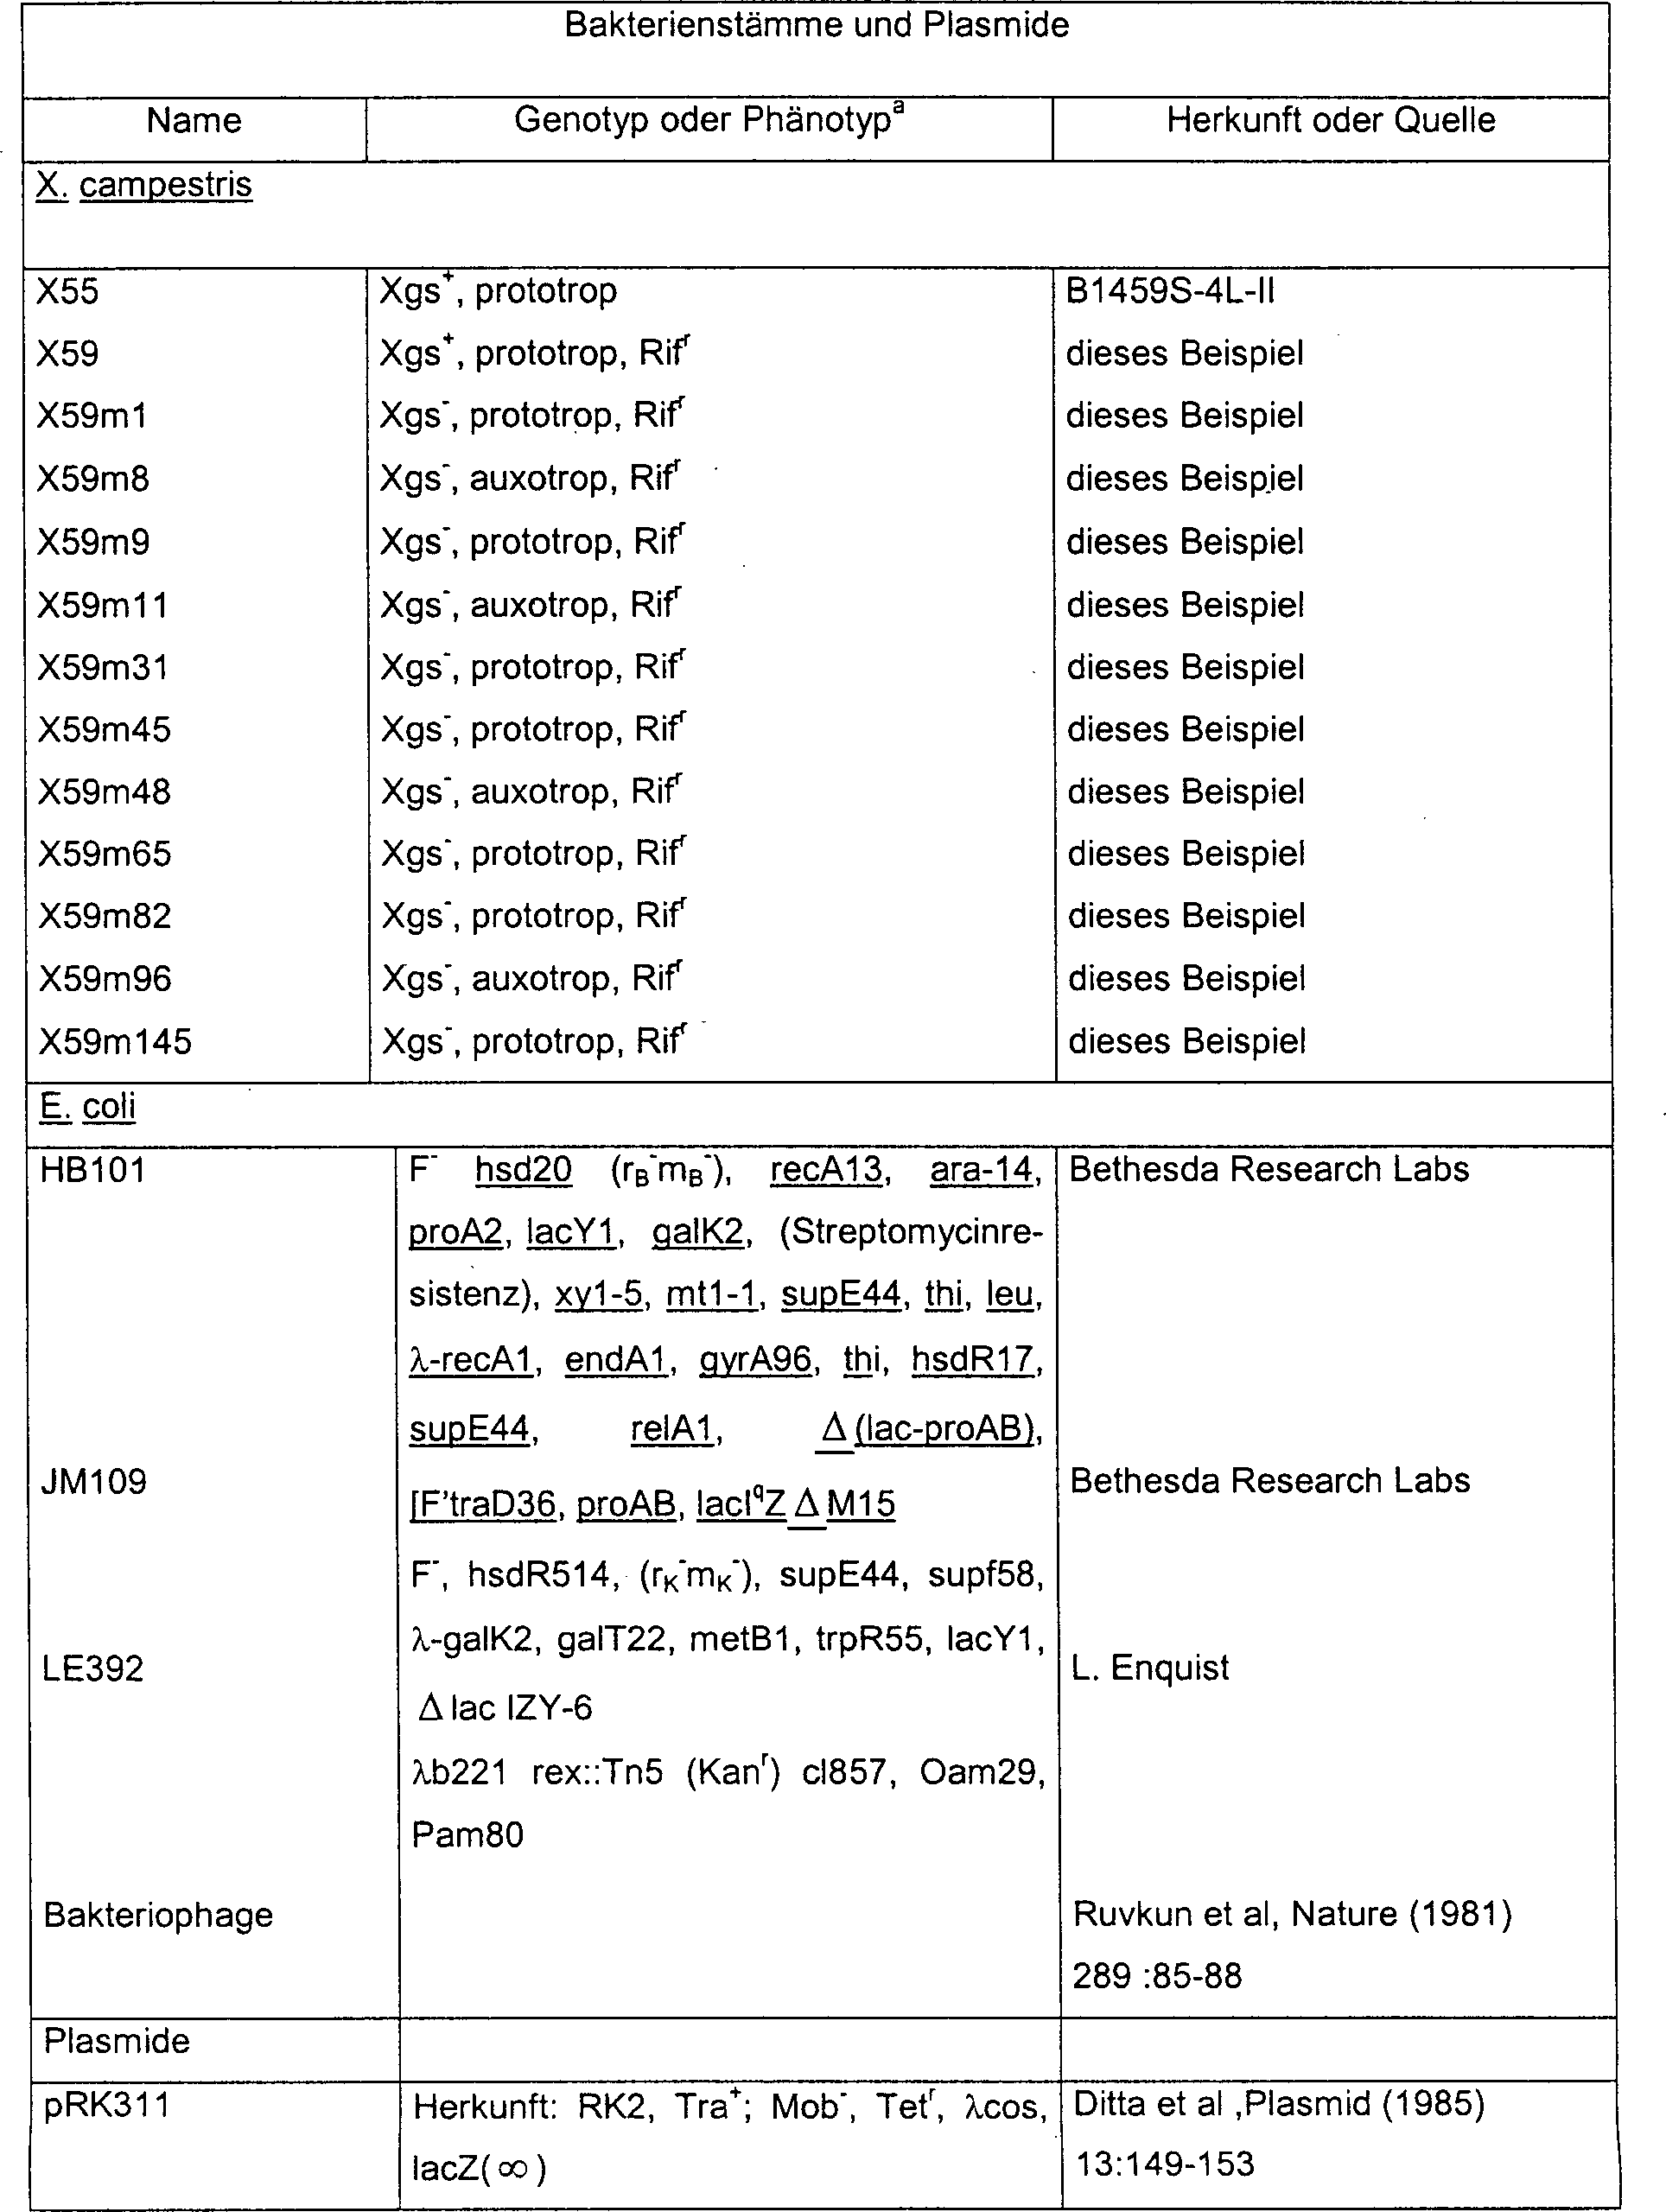
Bakterienstämme und
Plasmide
-
Xanthomonas campestris B1459S-4L-II
(unser Stamm X55, erhalten vom Northern Regional Research Center)
war der Xgs+ (xanthangummisynthesepositiv)Stammvater aller unserer
X. campestris-Stämme.
Der Stamm X59 war ein spontanes rifampicinresistentes Derivat von
X55, der ebenfalls Xgs
+ war. Rif
r-Derivate von X55 entstanden mit einer Häufigkeit
von etwa 10
–9 und
wurden auf Agarplatten gesammelt, die mit Rifampicin (60 μg/ml) ergänzte Lurianährlösung enthielten.
Die Bakteriophage λb221
rex:: Tn5 cl857 Oam29 Pam80 (Ruvkun et al, Nature (1981) 289: 85-88)
war die Quelle für
Tn5 für
die Kartierung der Inaktivierung der einzuschiebenden Gene. Der
Stamm LE392 war der geeignete Wirt für die Propakation der Phage.
Alle Stämme
und Plasmide sind in Tabelle 1 aufgelistet: Tabelle
1
-
Wachstumsmedien
-
Xanthomonas-Spezien wurden kultiviert
durch Schütteln
in flüssigem
YT-Medium bei 30°C
mit Zusatz von 50 μg/ml
Rifampicin, 7,5 μg/ml
Tetracyclin und/oder 50 μm/ml
Kanamycin, die zur Stabilisierung des Plasmids zugesetzt wurden.
Das YT-Medium enthält
Bactotrypton (16 g/l), Bactohefeextrakt (10 g/l) und NaCl (5 g/l).
Alle Nähragarplatten
enthielten TBAB (Agarbase aus Trytoseblut von Difco) plus 1% (g/v)
Stärke.
Die Selektionsplatten für
das konjugale Kreuzen enthielten 7,5 μg/l Tetracyclin, 50 μg/l Kanamycin
und 50 μm/l
Difampicin. Minimalagarplatten enthielten die anorganischen Salze
M9 (Anderson, Proc. Natl. Acad. Sci. USA (1946) 32: 120–128) plus
Glucose, Manose oder Fructose in einer Menge von 1% (g/v) als Kohlenstoffquelle.
Das flüssige
Medium für
Versuche in Schüttelkolben
zur Messung der Xanthanakkumulation wird als „XG004" bezeichnet und bestand aus 1 X basischen
Salzen, 0,5% (g/v) Trypton, 0,25% (g/v) Hefeextrakt, 1 X Spurmineralien, 0,01%
(g/v) CaCl2 und 2% (g/v) Glucose. 10 X basische
Salze bestehen aus 6,8 g KH2Po4,
0,2 g MgSO4. 7H2O, 2,2
g L-Glutaminsäure,
2 g Citronensäure
in 100 ml, wobei der pH-Wert mit NaOH bei 30 °C auf 7 eingestellt war. 100
X Spurenmineralien waren 2,25 g FeCl3. 6H2O, 1,41 g MnSo4·H2O, 2,2 g ZnSO4.
7H2O, 0,25 g Cu-SO4. 5H2O, 0,4 g CoCl2.
6H2O, 0,26 g Na2MoO4. 2H2O, 0,4 H3BO3 und 0,06 g KI
pro Liter entioniziertem H2O (wobei zur
Lösung
der Salze HCl zur Lösung
der Salze zugesetzt wurde). E.coli wurde soweit dienlich in Luria-Medium
bei 37 °C
mit Zusatz von 10 μg/ml
Tetracyclin und 50 μg/ml
Kanamycin gezüchtet
oder auf Agarplatten, die Luria-Medium oder TBAB (Difco) enthielten.
-
Mutagenese von X. campestris Etwa zwei x 109 frischgezüchtete Zellen
(eine Extinktion von 1 bei 600 nm entspricht 109 X.
campestris-Zellen wurden in 2 ml eines Mineralsalzmediums suspendiert
und unter Zusatz von 40 μl
Ethylmethansulfonat (EMS) 1, 2 oder 3 h lang bei 30 °C geschüttelt. Nach
jeder Behandlung wurden Proben von 0,5 ml entnommen, zweimal mit
Yt-Medium gewaschen und in 2 ml YT-Medium resuspendiert und über Nacht
bei 30 °C
geschüttelt.
Verdünnungen
wurden auf TBAB plus 1% (g/v) Stärkeplatten
ausgebreitet. Nach drei Tagen wurden nicht-mukoide Kolonien (etwa
1% der Gesamtmenge) geerntet. Die als X59m1 bis X59m150 bezeichneten
Mutanten wurden auf die Retention des Rifr-Markes
des Ausgangsstamms X59, auf die Anwesenheit von klaren Zonen um
Kolonien auf stärkeenthaltenden
Platten und auf ihre Fähigkeit
der Utilisirung von Kohlestoffquellen untersucht.
-
DNA-Isolation
und rekombinante DNA-Methoden
-
Plasmid-DNA wurde mit dem Siedeverfahren
von Birnboim du Doly (Nucleic Acids Res. (1979) 7: 1513–1523) isoliert.
Häufig
eingesetzte Plasmide wurden darüber
hinaus durch Gleichgewichtssedimentation in Dichtegradienten von
CsCl gereinigt, die Ethidiumbromid enthielten (Maniatis et al, 1982,
Molecular Cloning, A Laboratory Manual, Cold Spring Harbor Laboraton,
Cold Spring Harbor, NY). Die Restriktionsenzyme (von Boehringer
Mannheim GmbH) wurden nach den Vorschriften des Herstellers eingesetzt.
Die Homologie der DNA-Sequenz wurde gezeigt durch das Blotting-Verfahren
von Southern (Maniatis et al, supra), wobei für die DNA-Immobilisierung eine Zeta-Sonde (Bio-Rad)
eingesetzt wurde. Die für
die Hybridisierungssonde eingesetzte DNA war mit [32P]dCTP
markiert (für
die Nick-Translation wurde ein Reagenziensatz von Bethesda Research
Laboratories eingesetzt). DNA-Fragmente
wurden in Tris-Acetatpuffer (Maniatis et al, supra) elektrophonetisch
durch Agarosegele (0,6 bis Konjugation und Komplementierung von
Xgs–-Mutanten
Die vollständige
Bibliothek (oder spezielle Elemente der Bibliothek) wurden mit triparentalen
Kreuzungsschema (Ditta et al, Proc. Natl. Acad. Sci. USA (1980)
77: 7347–7351)
von E. coli auf X. campestris übertragen.
Aus frischen Über-Nacht-Kulturen
wurden 109 Empfängerzellen (Xgs–-Mutanten
von X. campestris) 5 × 10⁸ Donorzellen (JM109-L[X59], die Bibliothek)
und 5 × 10⁸ Helferzellen (E. coli HB101 enthaltend
das Plasmid pRK2013) gemischt und durch einen HA-Milliporfilter
0, 45 μm
geschickt. Die Filter wurden über
Nacht bei 30 °C
auf TBAB-Platten inkubiert und dann die Zellen in 2 ml Selektionsmedium
(TBAB mit 7,5 μg/ml
Tetracyclin und 50 μg/ml
Rifampicin) gewaschen. Die Zellen wurden im Verhältnis 104 bis
105 verdünnt
und auf Selektionsplatten ausgebreitet, die Antibiotika enthielten.
Die Komplementation (Wiederherstellung des Xgs+-Phänotyps in
einem Xgs–-Mutanten)
erfolgte mit einer Häufigkeit
von 0,1 bis 0,5 . Die Xgs+-Exkonjugate wurden
gereinigt und das rekombinante Plasmid isoliert und zur Aufbewahrung
und weiteren Reinigung auf E. coli JM109 zurück übertragen. Die weitere Kreuzung
mit einem gereinigten Mitglied der Bibliothek erhöhte die
Xgs+-Häufigkeit
in dem Exkonjugaten auf 100%.
-
Messung der
Xanthan-Akkumulation
-
Die zu untersuchenden Stämme wurden über Nacht
in flüssigem
XG004-Medium gezüchtet,
verdünnt und
mit der gleichen Zelldichte suspendiert. Kolben (Fassungsvermögen 125
ml), die 100 ml des Mediums XG004 enthielten, wurden mit gleicher
Anzahl von Zellen (1 × 10⁸) geimpft und bei 28 °C und 250 min–1 geschüttelt. Während des
Stehens der Proben wurden jedem Kolben 20 ml Isopropylalkohol zugesetzt,
um die Exopolysaccharide auszufällen.
Der Niederschlag wurde auf einem GFA-Filter gesammelt, welches dann
in einem Vakuumofen getrocknet und gewogen wurde.
-
Ergebnisse
-
Isolation von defekten
Mutanten bei der Synthese von Xanthanpummi (Xgs–)
-
sDer Stamm X55 (NRRL B1459S-4L-II
des Northern Regional Research Center) ist der Stammvater des "wilden Typs" der meisten heute
eingesetzten xanthanproduzierenden Stämme von X. campestris. Der Stamm
X55 war der. Stammvater aller anderen X. campestris, die bei dieser
Arbeit eingesetzt wurden. Es wurde ein spontanes Rifr-Derivat
von X55 isoliert durch Ausbreiten von etwa 109 Bakterien
auf einer Platte, die 60 μg/ml
Rifampicin enthielt. Der Rifr-Phänotyp von
X59 war geeignet als Markierer zur Unterscheidung der Zellvermehrung
von Verunreinigungen nach der Mutagenese und bei der Gegenselektion
nach E. coli-Donoren bei konjugalen Kreuzungen. Sowohl X55 als auch
X59 bilden nicht zu unterscheidende mukoide Kolonien auf Nähr- und
Minimalagarplatten.
-
Es wurde eine Auswahl von Xgs–-Mutanten
erzeugt, indem der Stamm X59 (und weniger häufig X55) Ethylmethansulfonat
(EMS) ausgesetzt wurde. Nach Wachstum bei 30 °C über drei nicht-mukoide Kolonien gesammelt
und für
die weitere Verwendung gereinigt. In den meisten Fällen unterschieden
sich die nicht-mukoiden Kolonien erheblich in ihrem Aussehen, jedoch
zeigten einige unabhängig
isolierte Mutanten ein ähnliches
nicht-mukoides Aussehen. Letztere konnten unterschieden werden durch
Ausplattieren auf unterschiedlichen Kohlenhydratquellen und als
Funktion der Wachstumszeit. Bei jeder Behandlung mit EMS wurde nur
ein Mutant ausgewählt,
außer
wenn die Morphologie der Kolonie unverkennbar war. Die Mutanten
von X59 (die fortlaufend nummeriert mit X59m1 bis X59m200 bezeichnet
sind) wurden auf den parentalen Rifr-Markierer
untersucht. Hinweise darauf, dass ein Überlebender der Mutagense X.
campestris war (ein Amylaseproduzent) war die klare Zone um die
Kolonien, die auf einer stärkeenthaltenden
Nähragarplatte
ausgebreitet waren und das charakteristische gelbliche Pigment der
Kolonie. Viele der Mutanten wurden auch auf ihre Fähigkeit
zum Wachstum auf Minimalagarplatten untersucht, die eine Reihe von
Zuckersubstraten enthielten, um unikale Isolate von Geschwistern
zu unterscheiden.
-
Klonieren der X. campestris-DNA
in einen Cosmidvektor
-
Die gesamte DNA des Stammes X59 (Xgs+) wurde mit der Siedemethode von Birnboim
and Doly, supra hergestellt und mit Sau3A-Restriktionsendonuklease
teilweise digestiert. Große
Fragmente von 20 bis 30 kb wurden mit Geschwindigkeitssedimentation
bei neutralen Saccharosegradienten gereinigt. Dies stellte sicher,
dass bei der Legierung nur benachbarte chromosomale DNA-Fragmente
in den Klonierungsvektor eingeschoben wurden. Der Klonierungsvektor
war das von Ditta et al, supra, konstruierte Cosmid mit breitem Wirtsbereicht,
pRK311. Zu klonierende DNA-Fragmente
wurden in die BamHI-Sequenz der mehreren Klonierungsstellen innerhalb
des IacZ-Bereiches des Vektors. Es wurde eine In-Vitro-Packung von
Strat-Gene verwendet.
Für die
In-Vitro-Packung für
die Insertierung von DNA in die Cosmidvektoren wurden etwa 20 bis
25 kb ausgewählt.
Der pRK311-Vektor trägt
auch ein selektierbares Tetracyclinresistenzgen. Nach der Ligation und
Verpackung in vitro wurde E. coli JM101 mit Phagenteilchen transfiziert
und tetracyclinresistente Kolonien individuell gewonnen. Jede tetracyclinresistente
Kolonie enthielt den Plasmidvektor zuzüglich einer Insertion der X.
campestris-DNA von 20 bis 25 kb. Durch das Poolen der Klone ergab
sich eine Bibliothek der DNA-Fragmente. Weil die Anzahl der Klone
in jeder Bibliothek 1.000 überstieg,
waren wir mindestens 99,9% sicher, dass alle Fragmente des X. campestris-Chromosoms
mindestens einmal abgebildet wurden. In diesem Beispiel wurden drei
unterschiedliche Bibliotheken verwendet.
-
Komplementierung
von Xgs Defekten durch klonierte normale DNA
-
Zum Transferieren von DNA wurden
intergenetische konjugale Kreuzungen verwendet. Das von RK2 stammende
Plasmid pRK311 hat einen breiten Wirtsbereich, ist jedoch nicht
selbst transferierbar. Damit pRK311 durch Konjugation zwischen E.
coli und X. campestris transferiert werden kann, wurde ein zweites „Helfer"plasmid eingesetzt,
pRK2013, welches einen begrenzten Wirtsbereich hat, der X. campstris
nicht umfasst. Der Transfer von rekombinanten Cosmiden wurde durch
triparentales Kreuzen erreicht, welches E. coli JM109/pRK3311, JM109/pRK2013
und den rezipienten Mutanten (Xgs–)
von X. campestris umfasste.
-
Durch konjugales Kreuzen mit der
vollständigen
Bibliothek der X. campestris-Gene wurden etwa 15 unterschiedliche
Xgs
–-Mutanten
komplementiert und zur Mukoität
(Xgs
+) wiederhergestellt. Die Häufigkeit
der Komplementierung betrug bei den meisten Kreuzungen etwa 0,1%,
wie es zu erwarten wäre,
wenn es nur eine Kopie eines jeden Gens pro Chromosom gäbe. Die
Ergebnisse können
verstanden werden durch Betrachten eines Satzes von verwandten Kolonien:
X59-pRK311, X59m45-pRK311
und X59m45-c45. Die Anwesenheit des c45-Cosmids stellt das mukoide
Aussehen wieder her, wie es beim Wildtyp X59 beobachtet wird. Der
mukoide Phänotyp
für X59m45-c45
hing ab von der ständigen
Anwesenheit des rekombinanten Plasmids, wie es sich aus der Beibehaltung
des Tet
r-Gens des Plasmids ergibt. Ein ähnliches
Gesamtmuster wurde für
alle komplementierten Xgs
–-Mutanten beobachtet.
Einige mukoide Exkonjugate wurden entnommen und durch Replattieren
gereinigt. Für
jedes wurde die DNA hergestellt und in E. coli transformiert und
dann zurück
gekreuzt in den Mutantenstamm des ursprünglichen Mutanten Xgs
–.
Dies ergab in jedem Fall eine Komplementierung von 100%, wobei alle
Tetracyclineresistenten Econjugate das gleiche rekombinante Cosmid
trugen. Die Transformanten von E. coli dienten auch als Quelle der
DNA für
die Restriktionskartierung sowie die Hypbridisierungsuntersuchungen
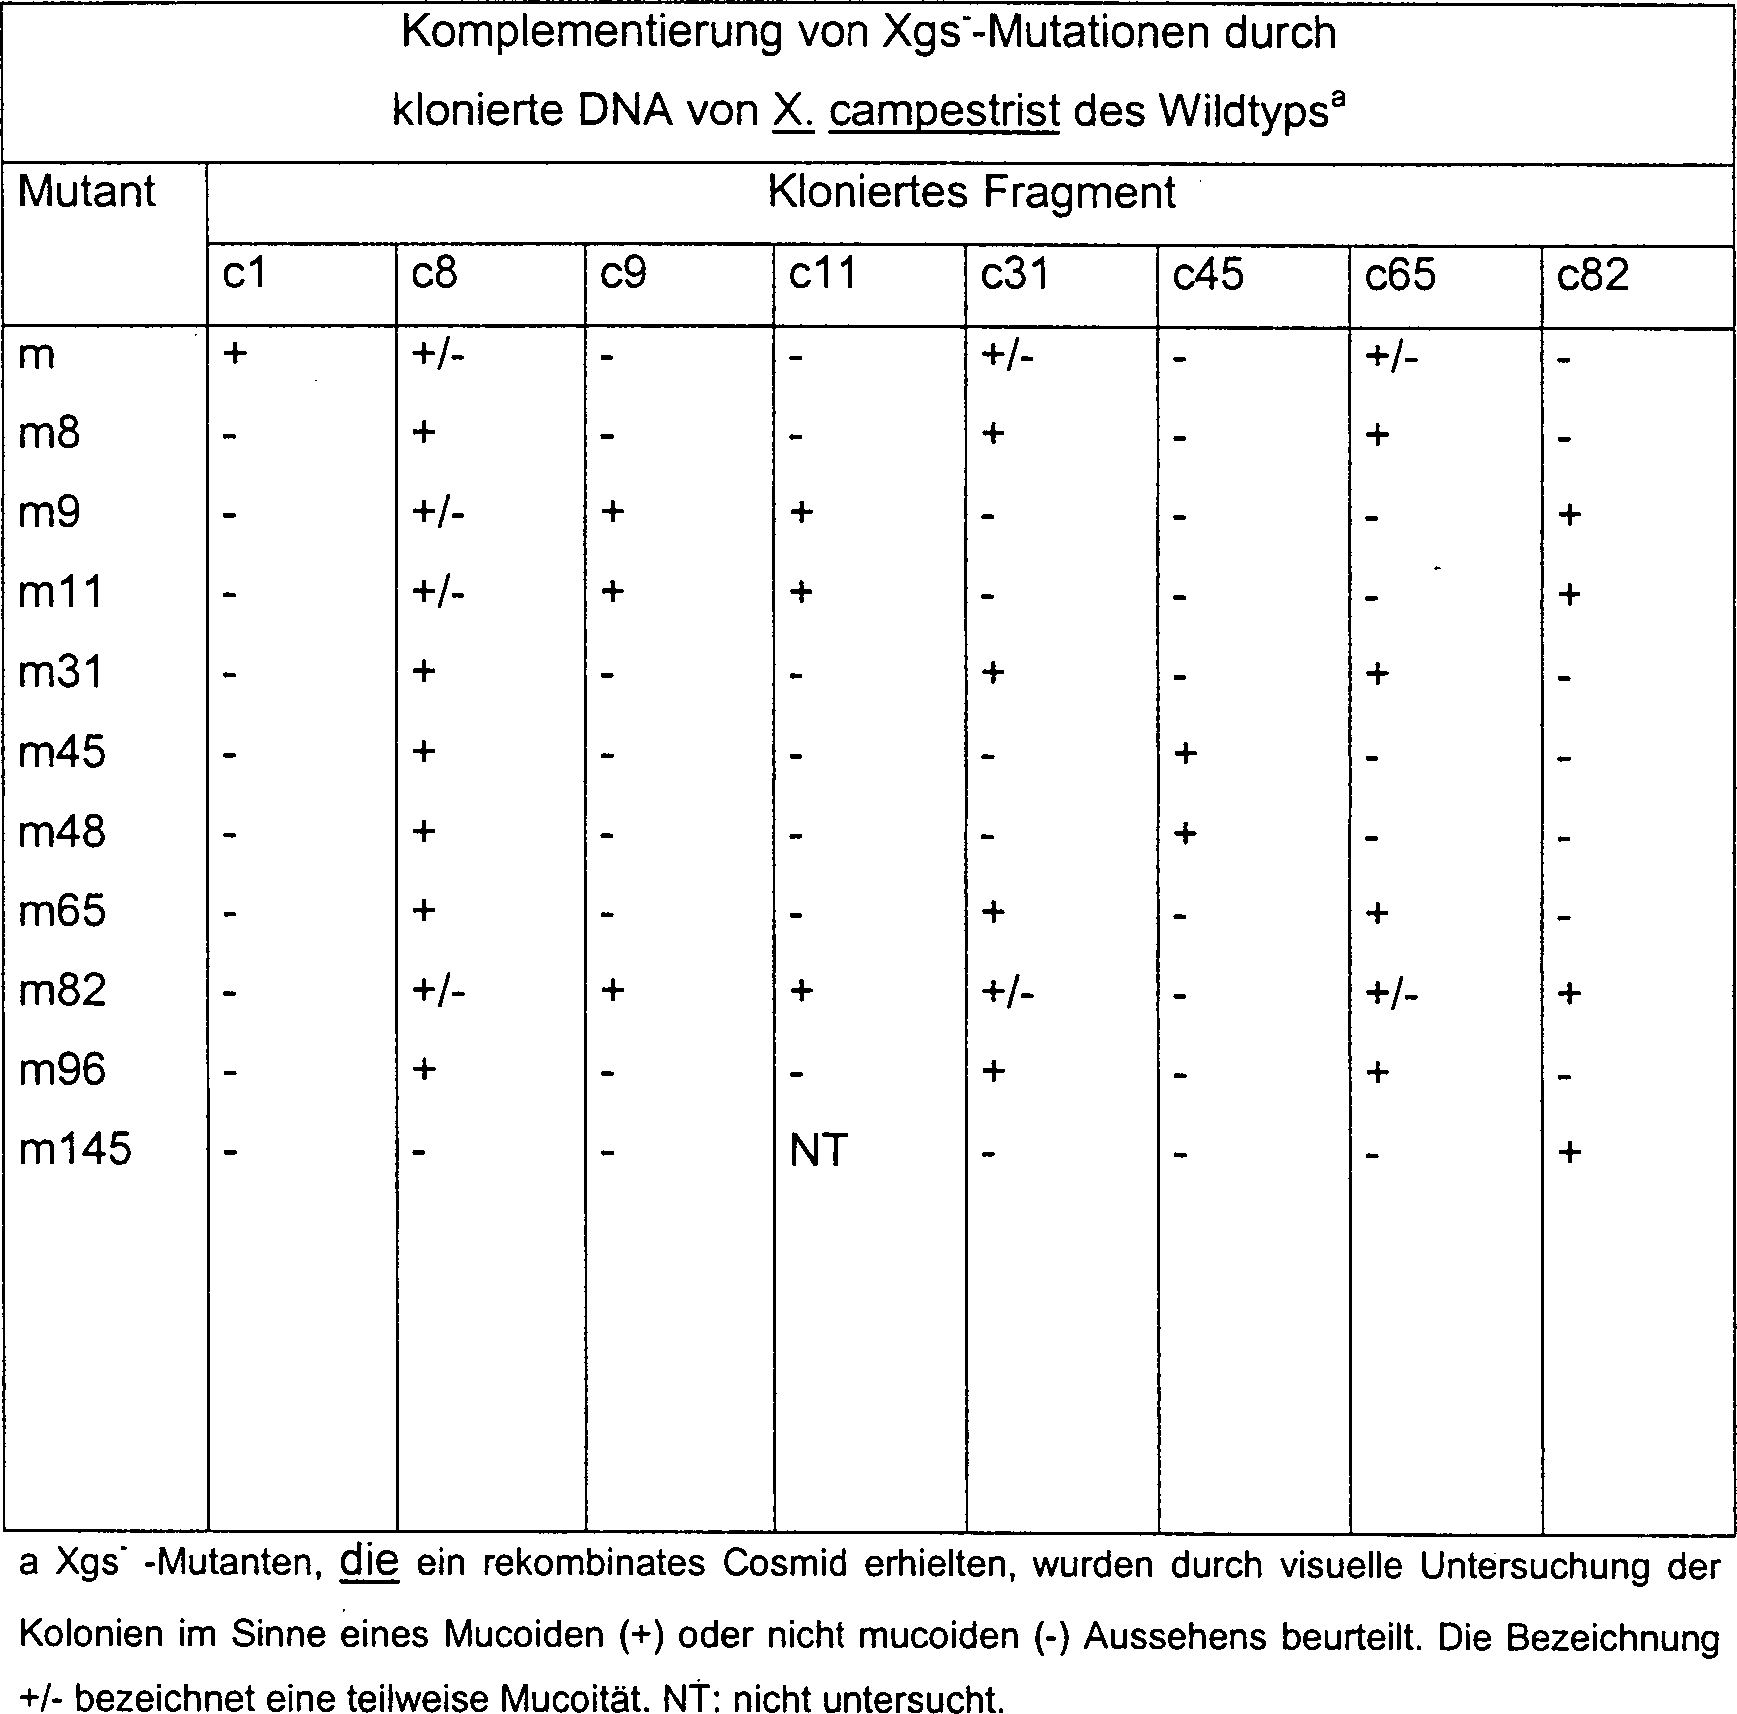
der DNA durch das Soutern Blotting. Eine Zusammenfassung der Komplementierungsdaten ist
in Tabelle 2 angeben. Tabelle
2
-
Ausrichtung von klonierten
Inserts und Xgs–-Mutationen durch Restriktionskartierung,
DNA-Hybridisierung und genetische Komplementierung
-
Wenn mehr als ein rekombinantes Plasmid
der vollständigen
Bibliothek die gleiche Mutation komplimentierte, wurde normalerweise
gefunden, dass sie entweder nicht unterscheidbare Geschwisterklone
waren oder eine beträchtliche
DNA-Homology teilten. Die Analyse der DNA-Hybridisierung demonstrierte
diesen Punkt. Einige rekombinante Plasmide wurden mit einem Gemisch
aus EcoRI- und HindIIIEnzymen. HindII schneidet in die Stelle der
Mehrfachklonierung zu einer Seite des klonierten Inserts, EcoRI
schneidet die andere Seite, und zwar innerhalb des Vektors. Dies
erzeugt zwei Fragmente der Vektor-DNA von etwa 8 und 13 kbp. Die
Abbauprodukt wurden elektrophonetisch durch Agarosegele getrennt
und zwei Proben analysiert (A und B), die die gleichen Abbauprodukte
enthielten. Die meisten der sichtbaren Banden der Färbung mit
Ethidiumbromid waren die X59-DNA. Die Hybridisierungssonden für die Probe
A waren ein radiomarkiertes c45-Plasmid, für die Probe B das Plasmid c31.
Das Hybridisierungsmuster zeigte, dass die Cosmide c8, c31, c45
und c65 überlappende
Segmente chromosomaler DNA tragen. Der Bereich, den diese vier Klone
gemeinsam haben, umfasst Restriktionsfragmente von 0,6 und 1,2 kb
und einen Teil des Fragments mit 4,3 kb.
-
Weitere Hybridisierungsergebnisse
ergaben sich aus einer anderen, jedoch ähnlichen Analyse. Die Plasmid-DNA
wurde gereinigt mit einem Gemisch aus EcoRI- und HindIII-Enzymen eingeschränkt und
die Fragmente durch Elektrophorese auf Agarosegelen getrennt und
dann auf Filter übertragen.
Bei einer ersten Probe war die Sonde radiomarkiertes c9H7, bei einer
zweiten Probe c1H5. Das Hybridisierungsmuster der ersten Probe zeigte
Homologie zwischen c9H7, c9 und c145, jedoch nicht zwischen c9H7
und c45-2, c45-1, c8, c31, c23b, c1 oder c1H5. Das Muster der zweiten
Probe zeigt, dass c1H5 nur zu c1 homolog ist. Das Cosmid c1H5 wurde
ursprünglich
aus der Bibliothek der klonierten Fragmente ausgewählt, weil
es zu c1 hybridisiert ist. Die Hybridisierungsergebnisse waren die
Basis zum Erstellen der in 1 gezeigten
Karte.
-
Die abgeleiteten Orte von Xgs–-Mutationen
sind in 1 oberhalb der
Karte der EcoRI- und HindIII-Restriktionsstellen an der linken Seite
mit "R/H" bezeichnet. Von
Klammern eingeschlossene Mutanten wurden zueinander nicht geordnet. Überlappende
klonierte Fragmente konnten nach Maßgabe des Restriktionsmusters
und der den DNA-Homologie ausgerichtet werden. Dieser Ausrichtung überlagert
sind Ergebnisse der Komplentierungsversuche, wobei "+" die Wiederherstellung des Xgs+-Phänotyps für einen
Xgs–-Mutanten
bedeutet. Dann wurde für
jeden Mutanten aus den Grenzen jedes klonierten Fragments der Bereich
der möglichen
Kartenpositionen bestimmt. Die meisten der Mutanten waren über einen
angrenzenden Bereich von etwa 40 kgp verteilt was etwa 2% des Chromosoms
von X. campestris entspricht. Ebenso wurden zwei andere unvernetzte
Loci identifiziert, die an der Xanthansynthese beteiligt sind. Ein
Locus wird durch vier überlappende klonierte
Fragmente dargestellt die auf den Cosmide c9, c11, c9H7 und c82
getragen werden. Alle vier stellen den mukoiden Phänotyp Xgs+ zu den unabhängigen Mutanten m9, m11 und
m82 her. Ein weiteres Cosmidenpaar (c1 und c1H5) teilen miteinander
die Homologie, jedoch nicht mit einem der anderen zwei Sätze.
-
Xanthansynthese durch Exconjuganten
von X59 mit Mehrfachkopien von komplementierenden klonierten Genen.
-
Jeder Komplementierungsklon wurde
durch Kreuzen in X59, bereits Xgs+, transferiert
und die Xanthansynthese gemessen. Als Kontrolle wurde X59 verwendet,
der den Vektor pRK311 alleine trug. Die Zellen wurden in Schüttelkolben
bei 30 °C
gezüchtet,
wobei mit Impfmengen von 107 Zellen pro
ml begonnen wurde. Dann wurde mit Standartmethoden die Xanthanmenge
bestimmt, und es folgte die Fällung
der Exopolysaccharide durch 2 Volumina Isoprpanol sowie Trocknen
und Wägen.
Bei den meisten Komglementierungsklonen hatten die zusätzlichen
Genkopien keinen feststellbaren Einfluss oder führten zu einer Abnahme der
Xanthanausbeute. Soweit sie signifikant mehr Xanthan lieferten als
die Kontrolleprobe, sind die Daten für die Xanthan und den Zellwachstum
in 2 angegeben. In keinem
Fall betrug die Zunahme mehr als 20%. Jedoch war die Geschwindigkeit
der Xanthanbildung zwischen 24 und 36 h bei X59-c45 doppelt so groß als bei
der Kontrollprobe X59-pRK311.
Wenn bei Langzeitversuchen X59 ohne pRK311 eingeschlossen wurde,
wurde gefunden, dass der große
Plasmidvektor selbst eine negative Wirkung auf die Xanthansynthese
hat (Daten nicht gezeigt). Bei ähnlichen
Versuchen produzierte X59-c8 im Mittel 22% mehr Xanthan als der
Ursprungsstamm X59 (Wachstumsperiode) von 48 h).
-
Diese Beispiele zeigen, dass alle
drei in 1 beschriebenen
Komplementärbereiche,
die Xanthangene enthalten, geeignet für die Herstellung von Stämmen sind,
die eine bessere Xanthanproduktion zeigen. Bei Einbau der exogenen
genetischen Information wurden reproduzierbare Änderungen der Xanthanbildung beobachtet,
jedoch waren diese Änderungen
klein, etwa +/- 15%. Die Unterdrückung
der Xanthanproduktion wurde durch den großen Plasmidvektor selbst verursacht,
der das Zellwachstum und die Xanthansynthese unterdrückte. Der
Einsatz von anderen Plasmidvektoren sollte die Produktivität der Stämme verbessern.
-
Beispiel 2
-
Subklonieren des c8-Fragments
und die dadurch entstehende Xantanproduktion
-
Das "c8"-Fragment
der X. campestris-DNA wurde weiter subkloniert um die nützlichen
genetischen Wesenszüge
zu lokalisieren. Die subklonierten Bereiche bezüglich c8 sind in 3 dargestellt (sie entspricht 1).
-
Jeder Subklon wurde in den für den Großteil dieser
Arbeiten verwendeten Vektor, pRK311 insertiert und zu erst in E.
coli transfomiert und dann in E. coli zu den X. campestris-Stämmen X55,
X59 und X50 konjugal gekreuzt. Das Zellwachstum und die Xanthanmenge
wurden gemessen in Schüttelkolben
von 100 bis 500 ml in Nährmedium,
welches pro Liter Leitungswasser folgendes empfiehlt: 10 g Pepton,
20 g Glucose, 3,5 g K2HPO4,
2,6 g KH2PO4, 0,26
g MgSO4 mit 7H2O,
6 mg H3Bo3, 6 mg
ZnO, 2,6 mg FeCl3 mit 6H2O,
20 mg CaCO3 und 0,13 ml (11, 6 n). Die Viskositäten wurden
bestimmt für
rohe Kulturmedien und halbgereinigten Xanthangummi. Wie bei Beispiel
1 erfolgte eine teilweise Reinigung von Xanthan durch Fällung der
Polysaccharide durch Zusatz von 2 Volumina Isopropylalkohol und
Sammeln des Niederschlags auf einem GFA-Filter, gefolgt von Trocknen
und Wägen.
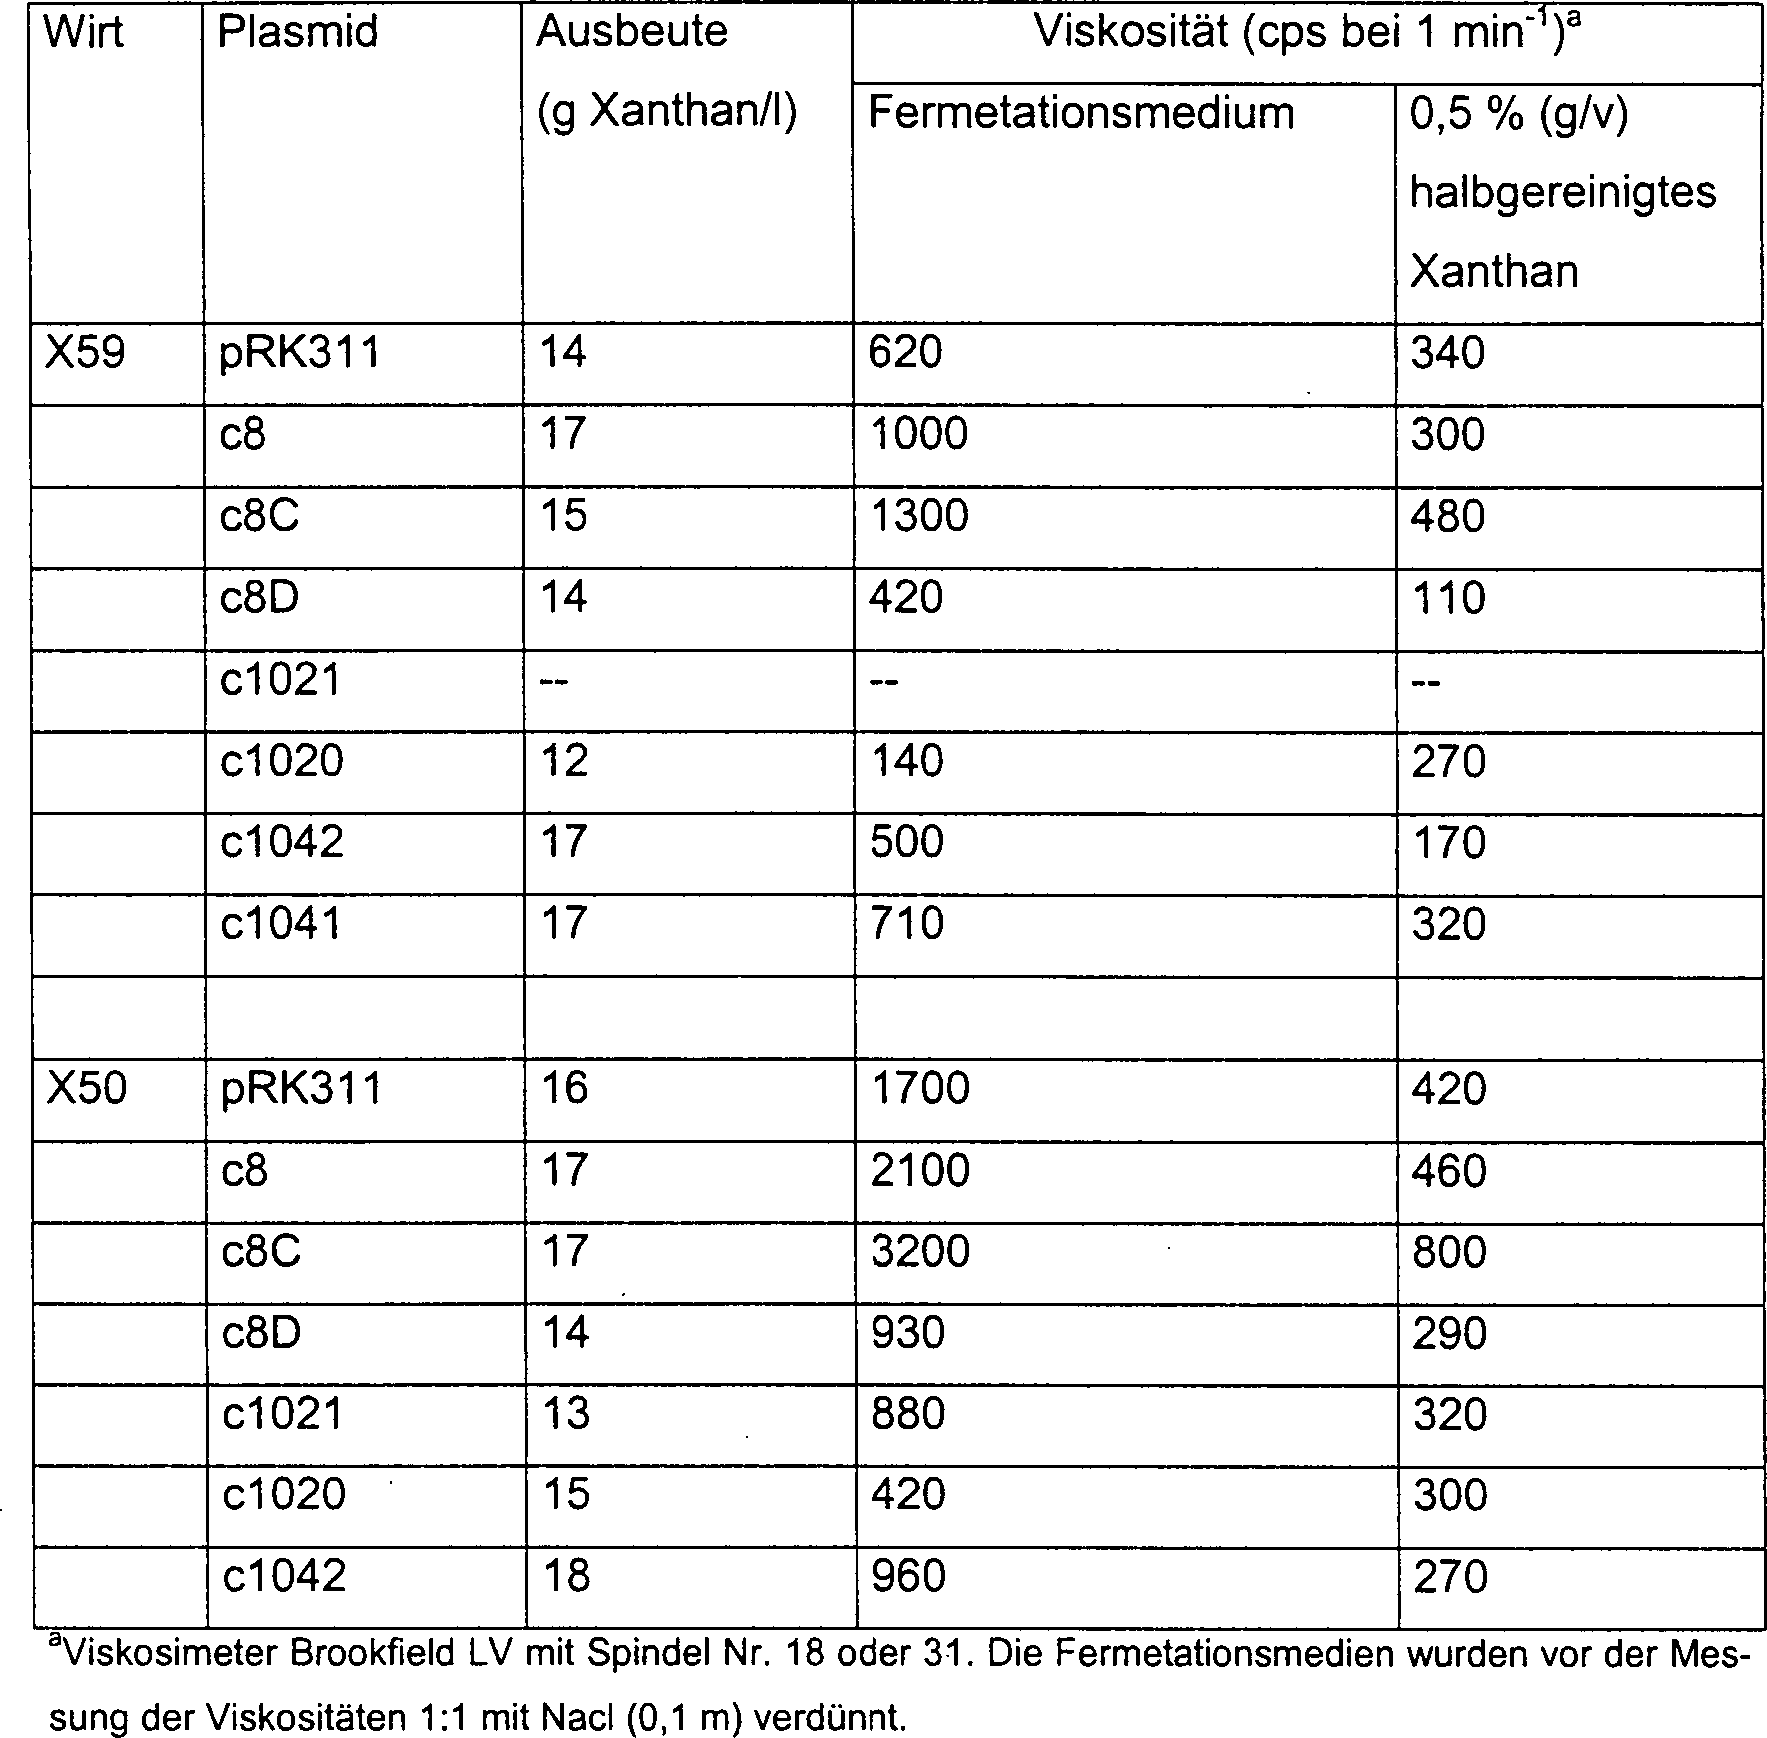
Die Ergebnisse sind nachfolgend aufgelistet.
-
-
Der Subklon c8C bildet soviel Xanthan
im Kulturmedium wie der Stammklon c8; jedoch hat das Produkt pro
Gewichtseinheit des halbreinen Materials eine unerwartet höhere Viskosität. Das Klonieren
und die Wiedereinführung
von klonierter DNA in X. campestris beeinflusst deshalb sowohl die
Quantität
als auch die Qualität
von Xanthan, wobei eine bessere Viskosität (oder andere Eigenschaften)
erhalten werden kann, indem man Subklone auswählt, die die gewünschten
Eigenschaften haben.
-
Beispiel 3
-
Direktutilisierung
von Lactose in geklärter
Käsemolke
für die
Synthese von Xanthangummi
-
Bei diesem Beispiel wird die Konstruktion
oder ein Plasmidvektor beschrieben, der geeignet ist für den Einbau
einer fremden DNA in das Chromosom von X. camestris mit diesem Vektor
wurden die lac-Gene von pGC9114 (RP1::Tn951) in ein rifampicinresistentes
Derivat von X. campestris B1459 insertiert. Die genetische Stabilität der Lactoseutilisierung
und die Umwandlung von Lactose in geklärter Molke in Xanthangummi
wurden bestimmt. Zusätzlich
wird eine vorläufige
Charakterisierung der Qualität
des Xanthangummis gegeben, der durch diesen Stamm aus geklärter Käsemolke
hergestellt wird.
-
Materialien
und Methoden
-
Bakterienstämme, Plasmide
und Wachstumsbedingungen
-
sEinige Materialien sind in Beispiel
1 beschrieben. X. campestris B1459S-4L-II (unser Stamm X55) wurde
erhalten vom Northern Regional Research Center in Peoria, Illinois.
Der E. coli-Stamm Mc1009 ( Δ lac ipozy-X74,
galK, galU, Δ ara-leu-7697,
strA, recA) wurde von J. Hoch erhalten, Stamm JC3272 (hls, trp,
lys, Δ lac
ipozy-X47, strA),
der das Plasmid pGC9114 (RP1::Tn951) enthielt, von G. Somkuti. Das
Plasmid pRK290 wurde erhalten von D. Helsinki (Ditta et al, Proc.
Natl. Acad, Sci. USA (1980) 77: 7347–7315). Die Xanthomonas-Stämme wurden
kultiviert bei 30 °C
in vier ähnlichen
flüssigen
Medien oder festen Medien (mit Agar): YT (10 g/l Difco-Hefeextrakt, 16 g/l
Difco-Trypton, 5 g/l NaCl); YTS (5 g/l Difco-Hefeextrakt, 5 g/l
Difco-Trypton, 3,5 g/l K2HPO4,
2,6 g/l KH2PO4,
0,26 g/l MgSO4, 7 H2O,
6 mg/l H3BO3, 6
mg/l ZnO, 2,6 mg/l FeCl3. 6H2O,
20 mg/l CaCO3); YPS (wobei Pepton in YTS
durch die gleiche Menge Trypton ersetzt wurde); PS (Hefeextrakt
und Trypton in YTS ersetzt durch 10 g/l Pepton); S (Hefeextrakt
und Trypton in YTS ersetzt mit 2 bis 4 g/l [NH4]2SO4). Das Volumen
der Kultur betrug immer ein Zehntel bis ein Fünftel des Kolbenvolumens. Die
E. coli-Stämme
wurden im LB-Medium oder YT gezüchtet.
Antibiotika und Kohlenhydrate wurden nach Bedarf zugesetzt. Die
Molke war die „süße Molke" von Sigma. Sie enthielt
65% Lactose des Trockengewichts, 13% Protein, 8% Asche und 2% Milchsäure. Eine
Lösung
mit 30% (g/v) wurde 20 min lang bei 121 °C autoklaviert und bis zur Klarheit
zentrifugiert. Der pH-Wert vor dem Autoklavieren und nach der Klärung betrug
etwa 6. Zur Messung der Endkonzentration von Lactose wurde der Phenol-H2SO4-Test verwendet.
-
Herstellung
und Analyse von DNA
-
Wegen Standardklonierungsverfahren
wird auf Maniatis et al, Molecular Cloning: A Laboratory Manual (1982)
Cold Spring Harbor Laborstory, Cold Spring Harbor, New York, verwiesen.
Die DNA wurde hergestellt mit dem Siedeverfahren oder dem Verfahren
nach Birnboim und Doly (Nucleic Acids Res. (1979) 1: 1513–1523) und
soweit erforderlich gereinigt durch Gleichgewichtssedimentation
in Dichtegradienten von CsCl, welches Ethidiumbromid enthielt. Die
Restriktionsenzyme und die DNA-Ligase wurden nach den Vorschriften
des Herstellers eingesetzt. Die Transformation von E. coli-Zellen
mit Plasmiden oder Ligationsgemischen entsprach dem Standard, wobei
der konjugale Transfer von Plasmiden in X. campestris dem triparentalen Kreuzungsschema
folgt (Ditta et al, Proc. Natl. Acad. Sci. USA (1980) 77: 7347–7351).
-
Isolation und
Analyse von Xanthangummi
-
Zur Messung der Mengen von Xanthangummi
wurden Kulturproben (ohne vorherige Entfernung von Zellen) zwei
Volumina Isopropylalkohol zugesetzt. Das ausgefällte Material wurde durch Filtration
auf What-Mann-Filtern 934-AH gesammelt, dann bei 80°C in einem
Vakuumofen getrocknet und gewogen. Für Viskositätsmessungen wurde das getrocknete
Präzipitat
in einem Mörser
gemahlen und durch ein Sieb von 250 μm gesiebt, bevor es in 0,1%
(g/v) NaCl resuspendiert wurde. Die Viskosiätsmessungen über einen
Bereich von Schergeschwindigkeiten wurden mit einem Brookfield-Viskosimeter
LVT durchgeführt.
Die Proteinkonzentrationen wurden mit dem Protein Assay von BioRad
und mit Standards aus Rinderserumalbumin (Sigma) durchgeführt.
-
Ergebnisse
-
Konstruktion von lactosepositivem
X. campestris
-
Das Plasmid pGC9114 ist ein Derivat
des Plasmids RP1 und trägt
Tn951, ein Transposon, welches die Lactoseutilisierung vermittelt.
Es wurde bewiesen, dass ein Unterfragment von pGC9114 von etwa 10,5
kbp, welches von den BamHI-Restriktionsstellen
flankiert ist, die lac-Gene trägt.
Dieses Fragment wurde zu pUC13 subtoniert Lac E. coli MC1009 zu
Lac+ transformiert (blaue Kolonien auf Nährplatten, die Xgal und ITPG
enthielten). Das gleiche Fragment mit" 10,5 kbp wurde in einen Plasmid-„Integrations"-Vektor (pSY1181)
subkloniert, der von E. coli zu X. campestris konjugal transferiert
wurde, jedoch im Letzteren nicht repliziert werden konnte. Wir bezeichnen
dies einen „Integrations"-Vektor, weil die
einzige Möglichkeit,
dass diese lac-Gene in dem Rezipienten stabil gehalten werden können darin
besteht, dass sie mit dem bakteriellen Chromosom rekombinieren und
darin integriert werden. Die vier Schritte bei der Konstruktion
der Plasmide pSY1181 und pSY1332 sind in 5 dargestellt und werden nachfolgend
erläutert.
-
Um die Integration in das Chromosom
zu unterstützen,
wurde ein Fragment der chromosomalen DNA in pSY1232 eingebaut. Isolierte
Fragmente des Chromosoms von wildem X. campestris, die die Synthese
von Xanthangummi zu Mutanten komplementierten oder wiederherstellten,
die zur Erzeugung des Polysaccharids nicht befähigt sind, sind in Beispiel
1 beschrieben. Kolonien sowohl des wilden Typs als auch von Mutanten, die
die auf Cosmidvektoren klonierten „Xanthan"-Gene trugen, waren mukoid, wogegen
die Mutanten alleine nichtmukoid waren. Ein solches Klon war c1,
ein Rekombinant zwischen dem Cosmidvektor pRK311 und einem Chromosomenfragment
von etwa 22 kbp. Ein Derivat von c1, welches das Transposon Tn5
(Kanamycinresitenz) an einer Stelle innerhalb von c1 trug, die die
Komplementierung von c1 für
den korrespondieren Mutanten m1 nicht aktivierte, war unser Ausgangsmaterial.
Wie in Schritt 1 von 5 gezeigt,
wurde das Plasmid mit BamHI-Enzym
eingeschränkt
und rezirkularisiert, um eine einfache BamHI-Klonierungsstelle zur
erzeugen, die flankiert war von der Komplementierungs-DNA von c1
und dem Kanamycinresistenzgen von Tn5. Der c1-Kan-Bereich wird von
HindIII-Stellen
gebunden.
-
Der zweite Schritt bestand in der
Konvertierung des Plasmids pRK290 mit kreuzbarem Wirtsbereich durch
Ersatz von oriV von pRK290 durch den Replikationsursprung von pUC13.
Der dritte Schritt bestand im Fusionieren von c1-Kan mit pRKpUC über die
HindIII-Stellen, um den „Integrations"-Vektor pSY1181 zu
erzeugen. Der letzte Schritt bestand im Insertieren der lac-Gene
an der BamHI-Stelle von pSY1181 zur Erzeugung von pSY1232. Mit pSY1232
transformiertes E. coli MC1009 ist resistent gegen Ampicillin und
Kanamycin und erzeugt blaue Kolonien auf Platten, die Xgal und IPTG
enthalten.
-
Damit X. campestris Lactose utilisieren
kann, wurde pSY1232 in den Stamm X59 transferiert, wobei ein triparentales
Konjugationsschema mit pRK2013 als Helferplasmid eingesetzt wurde
(Ditta et al, op. cit.). Die X-Konjuganten wurden auf Kanamycin
selektiert, weil X. campestris eine natürliche Ampicillinresistenz
hat, das andere Resistenzgen trug auf pSY1232. Es zeigte sich, dass
alle Kanr-Exkonjuganten auf Minimalnährplatten
auf Lactose wuchsen, nicht jedoch X59. Die Kanr-Lac+-Exkonjuganten waren ununterscheidbar, wobei eines,
es wurde als X59-32
bezeichnet, als repräsentativ
für die
weitere Arbeit ausgewählt
wurde. Ähnliche Ergebnisse
wurden erhalten durch Mobilisieren des Lac+-Plasmids
pGC9114 in X59. in flüssigen
Kulturen wurde gefunden, dass das plasmidtragende X59-pGC9114 langsamer
wuchs als sowohl X59 oder X59-1232, deren Wachstum mit ähnlichen
Geschwindigkeiten erfolgte. Diese langsamere Geschwindigkeit wird
derzeit den „Kosten" beim Aufrechterhalten
des Mehrfachkopie-Plasmids zugeschrieben.
-
Es wurde sogleich festgestellt, dass
ohne Tetracyclinselektion das Plasmid pGC9114 aus einer Kultur von
X59 verloren wurde, wogegen ohne Kanamycinselektion für den Stamm
X59-1232 der kryptische Marker erhalten wurde. Viel wichtiger war,
dass die Fähigkeit
zur Lactoseutilisierung das gleiche Verhalten zeigte. Dies war konsistent,
weil mindestens ein Teil der pSY1232-DNA stabil in das bakterielle
Chromosom eingebaut war. Durch Analyse der DNA-Hybridisierung wurde
bestätigt,
dass das Plasmid mit engem Wirtsbereich in das Chromosom integriert
war (Daten nicht gezeigt). Weiterhin waren die Stellen der Restriktionsfragmente
konsistent mit der Insertion in den chromosomalen Bereich von c1.
In ähnlicher
Weise wird auch der Vektor pSY1181 in diesen Bereich integriert,
so dass der Stamm resistent gegen Kanamycin wird.
-
Stabilität von integrierten
Lactosegenen
-
Weil die Absicht insgesamt darin
bestand, einen stabilen Stamm zum Konvertieren von Lactose in Xanthangummi
zu erzeugen, wurde die Stabilität
dieses Merkmals gemessen nach serienhaftem Subkultivieren von X59-pGC9114
und X59-1232 über
viele Generationen ohne Tetracyclin zur Selektion von Plasmid pGC9114
oder Kanamycin im Fall von X59-1232. In beiden ist der Wirt X59
resistent gegen Rifampicin. Dies erlaubt eine Gegenselektion nach
rifampicinempfindlicher, zufälliger
Verunreinigung beim wiederholten, fortlaufenden Transfer. Jeder
Stamm wurde sowohl in Glucose als auch in Lactose gezüchtet, wobei
das Mengenverhältnis
des aus Lactose erzeugten Xanthans zur Glucose berechnet wurde.
Die Ergebnisse sind in Tabelle 4 angegeben. Die Fähigkeit
des das Plasmid tragenden Stamms X59 pGC9114 zum Konvertieren von
Lactose in Xanthangummi nahm beim dritten Durchlauf auf die Hälfte des
ursprünglichen
Wertes ab. Im Gegensatz dazu zeigte X59-1232, welches die in das
Chromosom eingebauten lac-Gene trug, bis zum Ende des Parallelexperiments
(insgesamt 42 Generationen) eine stabile Umwandlung von Lactose
in Xanthangummi. Tabelle
4


-
Utilisierung eines Kohlenwasserstoffsubstrats
für die
Synthese von Xanthangummi
-
Es wurden parallele Kolben in Schüttelkolben
von Stämmen
X59 (Lac–)
und X59-1232 (Lac+) auf die Utilisierung von Kohlenwasserstoffen
für die
Synthese von Xanthangummi untersucht. Die Messung der Exopolysaccharidakkumulation
erfolgte mit Glucosemolke, Lactosemolke und geklärter Käsemolke bei äquivalenten
Gewichtsprozenten von Glucose oder Lactose. Im Gegensatz zum stabilen
Lac+-Stamm
X59-1232 zeigte der Lac–-Elternstamm X59 in
geklärter
Molke keine erkennbare Umwandlung von Lactose oder Lactose in Xanthangummi.
Weil die Restemengen der Substrate aus Kohlenhydrat, Hefeextrakt,
Trypton und Molke nicht bestimmt wurden, konnte die Absolutleistung
der Umwandlung nicht berechnet werden. Jedoch sind die in Tabelle
7 gezeigten Mengen an Xanthangummi ähnlich denen der produktivsten
Stämme
X. campestris, die bei geregelter Fermentation mehr als 70% des
Substrats in Xanthan umwandeln können.
-
Tabelle 5
Qualität von aus Glucose, Lactose
und geklärter
Käsemolke
erzeugtem Xanthangummi Die folgenden Kulturen wurden in Schüttelkolben
gezüchtet,
die 200 ml PS-Medium enthielten, welches mit 2% (g/v) der angegebenen
Kohlenhydrate ergänzt
war: Stamm X59, Glucose; X59-1232, Lactose; X59-1232, geklärter Käsemolke (Lactose).
Nach einem Wachstum von 48 h wurden die Kulturen mit zwei Volumina
Isopropylalkohol ausgefällt, getrocknet
und bis zur einheitlichen Teilchengröße (etwa 100 bis 200 μm) gemahlen.
Von jeder wurde ein bestimmter Gewichtsprozentsatz in 0,1% (g/v)
NaCl resuspendiert, wobei die Gewichte unter Ausschluss von Wasser,
Protein und Asche bestimmt wurden. Die Viskositäten wurden über einen Bereich der Schergeschindigkeiten
gemessen, die Ergebnisse sind in
6 angegeben.
Die Lösungsviskositäten des
Xanthan enthaltenden Materials, welches durch X59 aus Glucose oder
durch X59-1232 aus Lactose hergestellt wurde, waren nicht unterscheidbar.
Jedoch erschien das in Anwesenheit von geklärter Molke hergestellte Material
weniger viskos und erforderte nahezu das doppelte Gewicht, damit
die gleiche Viskosität
entstand. Es wurde ein Mischversuch durchgeführt, der zeigte, dass eine
unbekannte Komponente in der geklärten Molke die Viskosiät von Xanthangummi
herabsetzt. Es wurde eine getrennte Kultur von X59-1232 hergestellt,
die auf PS-Medium plus Lactose gezüchtet wurde. Das Xanthan enthaltende
Material wurde entweder in Anwesenheit oder in Abwesenheit von zugesetzter
Molke ausgefällt.
Dann wurde genügend
geklärte
Molke zugesetzt, damit sich eine Lactosekonzentration von 2% (g/v)
ergab. Die bei diesem Mischversuch entstehenden Viskositäten sind
in
6 hinzugefügt. Der
größte Teil
des offensichtlichen Qualitätsunterschieds
ist auf den Einfluss der Glucose auf die Viskosität zurückzuführen.
 X59c31. Darstellung A zeigt die optische Dichte bei unterschiedlichen Zeiten des Zellwachstums, wogegen Darstellung B die Akkumulation von Xanthan zeigt. Die obere Kurve in Darstellung A repräsentiert vier Kulturen. In Darstellung B bedeutet die ausgezogene Linie X59c45, die gestrichelte X59pRK311 und die gepunktete X59c31.