-
GEBIET DER ERFINDUNG
-
Diese
Erfindung bezieht sich auf diagnostische und therapeutische Moleküle zum Nachweis
und zur Prävention
der bovinen spongiformen Enzephalopathie (BSE), von Skrapie (Skrapie)
und der Creutzfeldt-Jakob Krankheit (CJS). Die Erfindung bezieht
sich spezifisch auf drei miteinander nahe verwandte Proteine, BSAS,
SCRAPAS und CJAS, welche ursächlich
mit BSE, Skrapie und CJS in Zusammenhang stehen, auf Antagonisten
dieser Proteine und auf diagnostische Reagenzien zum Nachweis dieser
Proteine in klinischen Proben und in Nahrungsmitteln. Sie bezieht
sich auch auf den Gebrauch von Homologen dieser Proteine von Hamstern
und Mäusen,
die für
die Entwicklung und Testung von Methoden für den Einsatz in Impfstoffen
und anderen Agenzien mit therapeutischem Wert für die Therapie von Menschen
und Tieren mit TSE von Nutzen sind.
-
HINTERGRUND DER ERFINDUNG
-
Prion
Proteine (PrPs) sind eine Familie nahe verwandter Proteine, die
in mehreren allelischen Formen in der Membran von Neuronen bestimmter
Populationen in allen Tieren gefunden werden. PrPs werden im lyphoretikulären System
exprimiert und in der Milz und in anderem lyphoretikulärem Gewebe
repliziert (Kimberin R.H. und Walker C.A. Virus Res. 12: 201-211
(1989)). Die Veränderung
der molekularen Konfiguration (Faltung) eines PrP durch einen unbekannten
Mechanismus, der diese Proteine in infektiöse Partikel „Prionen" (PrPsc) umwandelt,
ist mit einer Gruppe von Krankheiten namens „Übertragbare Spongiforme Enzephalopathien" (TSE) verbunden
(Prusiner S.B. Science 252: 1515-1522 (1991); Prusiner S.B. Ed.,
Current Topics in Microbiology and Immunology 207 (1996); Westaway
D. et al., Trends. Microbiol. 3: 141-147 (1995); Goldfarb L.G. and
Brown P. Annu. Rev. Med. 46: 57-65 (1965)).
-
Drei
Mitglieder der TSE Familie sind von großer wirtschaftlicher und medizinischer
Bedeutung; es handelt sich um die bovine spongiforme Enzephalopathie
(BSE) bei Rindern, Skrapie bei Schafen und die Creutzfeldt-Jakob
Krankheit (CJS) beim Menschen. Die Pathologie der TSE zeichnet sich
durch Nervenzell-Dysfunktion und folgende fatale Neurodegeneration
aus; charakteristisch für
TSEs sind die symmetrische Aushöhlung von
Neuronen und Neurophilen sowie die Anhäufung von PrPsc um Neuronen
herum. Das letztere Phänomen gilt
als Ursache des Phänotyps
im von der Krankheit betroffenen Tier und Menschen (Darcel C. Vet.
Res. Commun. 19: 231-252 (1995)).
-
Man
nimmt an, dass Prionen sich selbst replizierende Proteine sind,
welche in ihrer veränderten
Konfiguration gegenüber
dem Abbau durch proteolytische Enzyme und Hitzebedingungen, die
gewöhnlich
zerstörerisch
für die
meisten Proteine sind, resistent sind. Man glaubt, dass das infektiöse Prion
auf unterschiedliche Spezies übertragbar
ist. Es konnte aber nicht zufrieden stellend erklärt werden,
wie ein im Gehirn vorkommendes und bisher nicht in biologischen
Flüssigkeiten
nachgewiesenes Protein in einer weidenden Viehherde von Tier zu
Tier übertragen
werden kann. Außerdem
ist die Autokonversion eines endogenen Proteins von einer harmlosen
nützlichen
Form zu einer hoch pathogenen, infektiösen Form rätselhaft; viele exotische Hypothesen wurden
hervorgebracht, um diese Phänomene
zu erklären.
-
Allerdings
haben einige plausible Hypothesen Einsicht in manche Aspekte des
o.g. Rätsels
geliefert, z.B. (i) wurde gezeigt, dass PrPsc in den Mandeln (Tonsillen)
von Tieren mit BSE und Skrapie, und vermutlich auch in Tieren, die
präsymptomatisch
für diese
Krankheiten sind (Schreuder B.E. et al., Nature 381; 563 (1996)),
nachgewiesen werden kann; (ii) wurde vorgeschlagen, dass Prionen
Rezeptoren sein könnten,
die ein unbekanntes Virus oder andere infektiöse Agenzien in die Zelle einführen könnten (Brown
P. (zitiert in „special news
report") „Putting
Prions to the Test" Science
273: 184-189 (1996)); (iii) scheinen Experimente in Mäusen darauf
hinzuweisen, dass PrP an Chaperon-Proteine (Protein X) bindet, was
die Bildung von PrPsc katalysiert (Telling G.C. Cell 83: 79-90 (1995));
(iv) deuten Experimente auch darauf hin, dass ein nicht identifizierter
Faktor für
BSE verantwortlich ist und dass Prionen als ein Wirt-Adaptationsagenz
wirkt (Lasmezas C.I. et al. Science 275: 402-405 (1997)); und (v)
wurde gezeigt, dass möglicherweise
eine Translation mit Leserahmenverschiebung in der Skrapie mRNA
bei der Konversion vom PrP zum PrPsc ein Rolle spielt (Wills P.R.
et al. Microbiol. Pathogenesis 6: 235-249 (1989); Kiyotoshi K. et
al. Proc. Natl. Aca. Sci. USA 94: 10069-10074 (1998)).
-
Es
gibt eine bemerkenswerte Beziehung zwischen Skrapie bei Schafen,
BSE bei Rindern und CJS beim Menschen; es wird angenommen, dass
BSE durch das Skrapie Prion initiiert wird, und dass einige Formen
der CJS durch den Konsum von BSE-infizierten Rindern, insbesondere
deren Hirnen, entstehen. Letzteres schien kürzlich durch die Entdeckung
eines so benannten BSE-Signatur-Moleküls bei Personen mit der „neuen
Variante CJS" Unterstützung zu
erhalten (Collinge, J. et al. Nature 283: 685-690 (1996)). Trotzdem, und
trotz eines großen
internationalen Bemühens,
die Pathogenese der TSE zu verstehen und nicht-invasive, allgemein
anwendbare Methoden zum präsymptomatischen
Nachweis dieser Krankheiten zu entwickeln, von denen BSE und Skrapie
riesige Auswirkungen auf Kammerz und auf die Gesundheit der Bevölkerung
im Allgemeinen haben, wurden substanzielle Fortschritte in diesen
Zielrichtungen nicht gemacht.
-
ZUSAMMENFASSUNG DER ERFINDUNG
-
Es
war das Ziel der vorliegenden Erfindung, andere Proteine zu finden,
welche in Krankheits-spezifischer Weise exprimiert sind, mit PrP
interagieren und dieses zu PrPsc umwandeln können. Wir glaubten, dass solche
Proteine, weil sie in Körperflüssigkeiten
vorkommen würden,
hoch spezifische ante-mortem diagnostische Marker für präsymptomatische
Rinder, Schafe und Menschen sein würden, und dass sie als Zielmoleküle für therapeutische
Maßnahmen
zur Kontrolle der Symptome von TSE Krankheiten bei Tieren und beim
Menschen eingesetzt werden könnten.
Außerdem
versuchten wir, Methode/Methoden zu erfinden, welche Kreuz-Infektionen
beim Menschen und anderen Tieren durch BSE und Skrapie verursachende
Agenzien feststellen können.
-
Der
Erfindung nach lag die Problemlösung
in der Nutzung der Analogie zwischen Prion-Krankheiten und der Alzheimer
Krankheit (AD), insbesondere der Beziehung zu einem Protein ALZAS,
welches wir als potentiell verursachenden Faktor aller AD-Formen
entdeckt haben. ALZAS (Bergmann J.E. et al. Neurobiol. Aging 17:
S14 (1996)) ist kodiert und exprimiert innerhalb des humanen APP
Gens; letzteres hat eine starke Verbindung zu AD. Durch post-translationelle
Modifikation des APP Genproduktes, dem „β-Amyloid Vorläufer Protein", entsteht das β-Amyloid
Protein (Aβ).
-
Aβ spielt eine
zentrale Rolle in der Pathophysiologie von AD (Scheuner D. et al.
Nature Medicine 2: 864-870 (1996)). Vor kurzem wurde gezeigt, dass
Proteinprodukte des APP Gens mit eine Leserahmenverschiebung verursachenden
Mutationen und das Ubiquitin β Gen
bei der Pathologie der Alzheimer Krankheit und des Down Syndroms
beteiligt sind (van Leeuwen F. et al. Science 279: 242-247 (1998)).
ALZAS, welches aus Aβ,
der APP-Transmembran-Signalsequenz
und einer einzigartigen, Intron-kodierten
c-terminalen Sequenz zusammengesetzt ist, ist in Hirn, Blut und
Speichel aller Menschen mit AD nachweisbar und hat zur Verursachung
der klinischen Symptome von AD geeignete vorhersehbare biochemische
Charakteristika (Bergmann J.E. et al. Neurobiol. Aging 17: S14 (1996)).
Die pathophysiologischen Ähnlichkeiten
zwischen AD und den TSEs, insbesondere CJS, und die implizierte
Beziehung von ALZAS zu APP/Aβ,
führten
zu unserer Suche nach einem dem ALZAS ähnlichen Molekül, welches
innerhalb der Prion Protein Gene von Rindern, Schafen und Menschen,
und auch von Hamstern und Mäusen
kodiert ist. Die beiden Nager-Spezies wurden ausgiebig von Wissenschaftlern
in dem Bestreben, ein TSE-Modell herzustellen, genutzt. Unter Benutzung
der von uns „disease
gene discovery by positional searching" (DGDPS) genannten Methode (s. Bergmann
J. und Preddie E. „WIPO" Veröffentlichungen
Nr. WO98/07850 und Nr. WO98/07851) führte unsere Suche zu der Entdeckung der
Proteine BSAS, SCRAPAS und CJAS, die innerhalb der PrP Gene von
Rindern, Schafen und Menschen kodiert und exprimiert sind. Außerdem entdeckten
wir die im PrP Gen von Maus und Hamster kodierten Proteine MPAS
und HAMPAS. Da die für
diese Proteine kodierenden Sequenzen in der chromosomalen Region gefunden
wurden, in der sich das Prion Protein Gen befindet, nannten wir
sie „prionine". Es folgt eine kurze Beschreibung
von DGDPS, wie es zur Entdeckung der Prionine angewendet wurde.
-
Beziehung von BSAS und SCRAPAS
zu BSE und Skrapie
-
Diese
Proteine scheinen spezifisch mit der Entwicklung von BSE bei Rindern
und Skrapie bei Schafen in Verbindung zu stehen. BSAS und SCRAPAS
erscheinen im Blut aller Tiere mit klinischen Symptomen der Krankheit
und bei einem signifikanten Anteil von Tieren, die der Krankheit
ausgesetzt waren, gewöhnlich
aber nicht bei Tieren, die mit der Krankheit nicht in Berührung gekommen
waren. Außerdem
produzieren exponierte Tiere einen spezifischen Antikörper (endogenen
Antikörper),
der gegen BSAS oder SCRAPAS gerichtet ist und der präsymptomatisch
in betroffenen Tieren nachgewiesen werden kann. Die Konzentration
des endogenen Antikörpers
scheint in Tieren mit klinischen Krankheitssymptomen generell niedriger
zu sein, was uns vermuten ließ,
dass die Initiierung der symptomatischen Krankheit von einer Schwächung der
Immunabwehr begleitet ist.
-
BSAS und SCRAPAS
-
BSAS
und SCRAPAS sind relativ kleine Proteine mit β-Faltblatt-Struktur, die von
innerhalb des Rinder- bzw. Schaf-Prion Protein Gens exprimiert sind.
Die Proteine sind extrem hydrophob, haben die Fähigkeit, sehr stark an Prion
Proteine zu binden und konvertieren diese zur β-Konformation. Sie haben auch
Sequenzhomologien mit einer Region im Prion Protein, für die durch
Andere gezeigt wurde, dass sie bei der Wechselwirkung des Schaf-Prion
Proteins mit dem so genannten „Protein
X" beteiligt ist.
Außer
der Möglichkeit,
Membranen zu durchdringen, haben BSAS und SCRAPAS strukturelle Ähnlichkeit
zu DNA-bindenden Proteinen und auto-aktivieren womöglich ihre
eigene Expression. Über
das gesamte Molekül
betrachtet haben sie untereinander ungefähr 60% Ähnlichkeit. Mehr als 20% der
Aminosäuren
sind Tryptophan, was unvergleichlich höher ist als der durchschnittliche
Tryptophan-Gehalt von < 1%
gerechnet über
alle Proteine, deren Aminosäuresequenz
bekannt ist.
-
Zwei
Epitope (BSAS epi und SCRAPAS epi, jeweils 14 Aminosäuren) wurden
ausgewählt,
chemisch synthetisiert und benutzt, um polyklonale Antikörper gegen
BSAS (BSAS pcAb) und SCRAPAS (SCRAPAS pcAb) in Kaninchen herzustellen.
Zwei innerhalb von BSAS epi und SCRAPAS epi liegende Unterepitope (BSAS
mepi und SCRAPAS mepi) wurden ebenfalls synthetisiert, am c-Terminus
amidiert und zur Affinitätsreinigung
einer spezifischen Antikörper-Population
aus BSAS pcAb und SCRAPAS pcAb herangezogen. Diese Antikörper und
die mepi Epitope wurden in den unten beschriebenen ELISA Tests eingesetzt.
-
ELISA Tests
-
Es
wurden 2 Typen ELISAs entwickelt. Der eine weist in Serum die Antigene
BSAS und SCRAPAS nach, der andere die gegen BSAS mepi und SCRAPAS
mepi gerichteten endogenen Antikörper
(spezifisches IgG). Die Spezifität
aller Epitope wurde sowohl in in kommerziellem Maßstab von
BSAS pcAb und SCRAPAS pcAb isolierten spezifischen TgG-Populationen,
als auch in aus Serumproben von ausgewählten BSE-infizierten Rindern
und Skrapie-infizierten Schafen isolierten endogenem IgG bestätigt. Potentiell
kreuz-reagierende antigene Epitope wurden in den gegenwärtig zugänglichen
Datenbanken nicht gefunden.
-
Vorbereitung der Serumproben
zum Testen
-
BSAS
und SCRAPAS sind extrem empfindlich gegenüber Einfrieren. Einfrieren über Nacht
bei –20°C reduziert
die Reaktion einer positiven Probe um 70-80%, Einfrieren bei –80°C eliminiert
die Reaktion völlig.
Wir nehmen an, dass diese hohe Empfindlichkeit gegenüber Einfrieren
am hohen Tryptophan-Gehalt der Proteine und an der Tandem-Anordnung
mehrerer Tryptophan-Triaden liegt. Die Wirkung des Einfrierens beeinträchtigt beide
ELISA Typen, sie ist aber für
den Antikörper-Einfang
ELISA nicht so stark wie für
den Antigen-Einfang ELISA (Antigen Moleküle binden aufgrund veränderter
Konformation irreversibel an das endogene IgG in positiven Sera,
was manchmal zu unregelmäßigen Ergebnissen
im Antikörper-Einfang
Test führt).
Daher sind eingefrorene Proben für
die ELISAs nicht geeignet. Für
diese Untersuchungen müssen
Serum Proben von frisch Blut bereitet und bei 4°C gelagert werden.
-
Beschreibung der Tests
-
Der Antigen-Einfang Test
-
Die
Vertiefungen („Wells") von Mikrotiterplatten
wurden mit 100 μl
Carbonat Puffer, pH 9,6, mit 5 μg/ml mepi-spezifischen
Antikörper
bei 4°C über Nacht
benetzt. Die Platten wurden 3 × mit
ELISA Waschpuffer, der 0,05 Tween-20 enthielt, gewaschen. 5 μl der Serumproben
wurden zu 45 μl
ELISA Waschpuffer mit 0,075% Tween-20 gegeben und bei 37°C für 30 Minuten
inkubiert. 50 μl
Sekundär-Antikörper (affinitäts-gereinigter,
für SCRAPAS/BSAS
spezifischer, mit Meerettich-Peroxidase (HRP) markierter Antikörper), 1/40
in Waschpuffer mit 0,05% Tween-20 verdünnt, wurden zu jedem Well hinzugefügt, und
die Platten wurden dann bei 37°C
für 45
Minuten inkubiert. Die Platten wurden wieder 5 × mit Waschpuffer mit 0,075%
Tween-20 gewaschen. 50 μl Substratlösung (Sigma
OPD Tabletten-Set) wurden zu jedem Well gegeben; die Farbentwicklung
geschah für 30
Minuten im Dunkeln, danach wurden die Platten bei 492 nm gemessen.
-
Der Antikörper-Einfang Test
-
Die
Wells von Mikrotiterplatten wurden mit 100 μl Carbonat Puffer, pH 9,6, mit
10 μg/ml
BSAS mepi oder SCRAPAS mepi bei 4°C über Nacht
benetzt. Die Platten wurden 3 × mit
ELISA Waschpuffer mit 0.05% Tween-20 gewaschen. 1,5 μl Serumproben
wurden zu 48,5 μl
ELISA Waschpuffer mit 0,075% Tween-20 gegeben und bei 37°C für 30 Minuten
inkubiert. Die Wells wurden 5 × mit
0,075% Tween-20-Waschpuffer gewaschen. 50 μl Sekundär-Antikörper (eine Mischung aus anti-bovines
IgG- und anti-Schaf IgG-Antikörper
(γ-Ketten-spezifisch
und mit HRP markiert), 1/12000 in Waschpuffer mit 0,05% Tween-20
verdünnt,
wurden zu jedem Well hinzugefügt,
und die Platten wurden bei 37°C
für 45
Minuten inkubiert. Die Platten wurden wieder 5 × mit Waschpuffer mit 0,075%
Tween-20 gewaschen. 50 μl
Substratlösung
(Sigma OPD Tabletten-Set) wurden zu jedem Well gegeben; die Farbentwicklung
geschah für
30 Minuten im Dunkeln, danach wurden die Platten bei 492 nm gemessen.
-
Beschreibung der DGDPS Prozedur
-
Generell
haben wir zunächst
ein Gen identifiziert, das in enger Beziehung zu einem schon mit
einer bestimmten Krankheit genetisch oder auf andere Weise assoziierten
Gen steht. Sodann haben wir die von dem Gen transcribierte mRNA
aus krankem Gewebe oder Patientenblut isoliert und nachfolgend mit
der mRNA und reverser Transcriptase cDNA hergestellt. Die neuartige
cDNA wurde dann mit spezifischen Primern, die die gesamte kodierende
Region der cDNA umfassten, verstärkt,
und die cDNA wurde aufgrund ihrer Größe nach Agarose-Gelelektrophorese
identifiziert. Schließlich
wurde die einzigartige cDNA vom Agarosegel isoliert. Dies ermöglichte
uns, das fragliche Molekül
auf seine Expression zu prüfen,
ohne mehrere Millionen cDNA Klone testen zu müssen.
-
Die
so in der vorliegenden Erfindung benutzte Prozedur und die erhaltenen
Ergebnisse sind in den folgenden Beispielen beschrieben.
-
Beispiel 1
-
Entdeckung des Rinder-PrP-Prionins
BSAS
-
- (1) Wir untersuchten die sequenzierten Regionen
innerhalb des bovinen Prion Protein Gen Locus und wählten potentielle
komplette Leserahmen (orf's)
aus, d.h. solche mit akzeptablen, korrekt plazierten Initiationssequenzen
(s. Kozak M. Nucleic Acid res. 12: 857-872 (1984)) und Translations-Terminations-Stopkodons (TAA,
TAG oder TGA),
- (3) dann wurden die orf's,
die die obigen Bedingungen erfüllten,
unter Benutzung des universellen Codes in putative Proteine übersetzt,
- (4) dann analysierten wir die putativen Proteine mit der in
unserem Besitz befindlichen, Komputer-unterstützten Protein-Fingerabdruck-Technologie
und erhielten Information über
die potentiellen biochemischen Charakteristika der abgeleiteten
Proteine,
- (5) als nächstes
wurden die biochemischen Charakteristika der abgeleiteten Proteine
mit den bekannten biochemischen Charakteristika von BSE korreliert.
-
Danach
prüften
wir, ob das Protein exprimiert ist: hierfür wurden innerhalb der Aminosäuresequenz
am N-Terminus und am C-Terminus des abgeleiteten Proteins unter
Benutzung der Methode von Hopp und Woods K.R. Proc. Natl. Acad.
Sci. USA 78: 3824-3828 (1981) zwei potentielle Epitope identifiziert/ausgewählt. Die
Sequenzen wurden mit den Sequenzen in Datenbanken verglichen, und
es wurden diejenigen ausgewählt,
die keine Homologen in den Datenbanken zu haben schienen. Gegen
sie gerichtete mono-spezifische polyklonale Kaninchen-Antikörper wurden
hergestellt und durch Immunoaffinitäts-Chromatographie an CNBr-aktivierter Sepharose
4B (Pharmacia) nach einer Prozedur gereinigt, die den ersten Teil
der Empfehlungen des Herstellers und den zweiten Teil wie in Current
Protocols in Molecular Biology (Vol 1) Ausubel F.M. et al. (Herausg.) John
Wiley & Sons
NY, NY 1991 beschrieben kombiniert, und das polyklonale IgG wurde
mit HRP gekoppelt. Zur Testung von Serumproben, Blut und Speichel
von BSE-positiven Kühen
auf BSAS wurde ein „Sandwich ELISA" im Enzym-basierten
Immuntest-Format (beschrieben in „ELISA and other Solid Phase
Immunoassays" (Kemeny
D.M. et al. (Herausg.) John Wiley & sons, N.Y., N.Y. (1988))) benutzt.
Dies geschah unter Einsatz von anti-BSAS IgG-HRP in einer kolorimetrischen
Reaktion mit „Sigma
OPD" als Substrat.
Der Vorgang ist im Abschnitt oben beschrieben.
-
Beispiel 2
-
Nachweis von BSAS, SCRAPAS und CJAS in
clinischen und anderen Proben
-
Die
Prionin Proteine wurden unter Verwendung der oben beschriebenen
ELISAs nachgewiesen. Da einige Moleküle der polyklonalen anti-TSE
Antikörper
mit unterschiedlichen Empfindlichkeiten mit Domänen des Hauptepitops einer
jeden TSE-Spezies kreuzreagieren, wurde anti-SCRAPAS-HRP als Sekundärantikörper für den Nachweis
von BSAS und SCRAPAS benutzt. Für
den Nachweis von CJAS wurde entweder anti-SCRAPAS-HRP oder anti-CJAS-HRP
eingesetzt.
-
Beispiel 3
-
Eine
andere Methode, die für
den Einsatz als Routinetest nicht geeignet ist (am Beispiel BSAS):
das BSAS Protein wurde aus 100 μl
Serum einer infizierten Kuh auf einer anti-BSAS Antikörper Immunoaffinitätssäule isoliert.
Das isolierte Protein wurde der SDS Gelelektrophorese, wie bei Schägger H.
und von Jabow G.I. Anal. Beiochem. 166: 368-379 (1987) beschrieben,
oder der PAGE ohne SDS unterzogen. Nach der Elektrophorese wurden
die Proteine dem Western Blotting unterzogen oder auf eine Nylon
Membran gepunktet und mit dem affinitäts-gereinigten Antikörper reagiert.
Interaktionen des Antikörpers
mit dem membran-gebundenen Protein wurde mit einem Chemilumineszenz-Kit
von Bio-Rad Inc. nach der Vorschrift des Herstellers (s.a. Blake
M.S. et al. Anal. Biochem. 136: 175-179 (1984)) sichtbar gemacht.
MOPAS und HAMPAS wurden mit der gleichen Vorgehensweise entdeckt;
allerdings wurde die Expression dieser Proteine in Tieren mit experimenteller
TSE noch nicht untersucht.
-
Beispiel 4
-
Wir
haben im Fall von BSAS und SCRAPAS eine spezifische Assoziation
(100%) der Proteine mit Tieren, bei denen die Krankheit bestätigt wurde,
oder die in irgendeiner Weise der Krankheit ausgesetzt waren; die
Proteine waren nicht mit Tieren assoziiert, die mit der Krankheit
nie in Berührung
gekommen waren. BSAS und SCRAPAS wurden im Serum von allen Tieren
nachgewiesen, die klinisch positiv für die Krankheit waren, und
von der Mehrzahl von Tieren, die keine klinischen Symptome zeigten,
aber von Herden mit sogar nur einem Fall der Krankheit kamen. CJAS
wurde im Serum von zwei CJS Opfern nachgewiesen, von denen eines positiv
für CJS
und für
AD war.
-
BESCHREIBUNG DER BEVORZUGTEN DARSTELLUNG
-
Der
Erfolg der vorliegenden Erfindung rührt von unserer Fähigkeit
her, die alternativen Gene, die für die potentiell pathogenen
Proteine BSAS, SCRAPAS und CJAS kodieren, innerhalb der PrP Gene
von Rindern, Schafen und Menschen zu finden. Die Entdeckung der äquivalenten
Gene in Mäusen
und Hamstern trugen zur Formulierung unseres Modells für TSE bei.
-
EINZELHEITEN DER ERFINDUNG
-
Im
Detail liefert die Erfindung Folgendes:
- (i)
fünf Protein
Moleküle
essentiell frei von natürlichen
Kontaminanten, die für
ein von BSAS, SCRAPAS, CJAS und MPAS und HAMPAS ausgewähltes Protein
kodiert. Im Besonderen liefert die Erfindung die vorgenannten Protein
Moleküle,
deren Sequenzen SEQ ID: NO 1, SEQ ID: NO 2 SEQ ID: NO 3, SEQ ID:
NO 4 and SEQ ID: NO 5 sind.
SEQ ID: NO 1
M E H W G E P
I P R T G Q S W R Q P L S T S G R G W L G S A P S R W L G P A S
W R W L G P A S W R W L G S A P W W W L G T A T W W W R L G S R
W Y P R S M E Q T Q
SEQ ID: NO 2
M E H W C E P I P G T
C Q S N R Q P L P T S G R G N L G S A P W R W L G P T S W R W L
G S A P W W W L G T A T W W W R L G S R W
SEQ ID: NO 3
M
E H N G Q P I P G A G Q P N R Q P L P T S G R N W L G A A S W W
W L G A A S W W W L G A A P W W W L G S R R W H P Q S V E Q A E
SEQ
ID: NO 4
M G A A G D N L M V V V G V S P M A V D G A K E G
V P I I S G T S P A N Q K P T S S I W Q G L R Q L G Q
SEQ ID:
NO 5
M G T A P W W W L G T T S W W W L G S A P W W W L G S
R R W H P Q S V E Q A Q
- (ii) Eine Methode zum Nachweis latenter CJS, BSE und Skrapie
beim Menschen, bei Rindern und Schafen unter Verwendung der oben
beschriebenen ELISA Methode zur Detektion von endogenem IgG, das
gegen ein Epitop in dem Protein BSAS (SEQ ID: NO 1), oder dem Protein
SCRAPAS (SEQ ID: NO 2) oder dem Protein CJAS (SEQ ID: NO 3) gerichtet
ist, in Blut von Tieren und Menschen, die keine Symptome der Krankheit
zeigen.
- (iii) Eine Methode zum Nachweis von Kreuzinfektionen bei Tieren
durch andere Tiere und beim Menschen durch Tiere mit der oben unter (ii)
beschriebenen Methode zur Detektion von spezifischen anti-Prionin
Antikörpern
im Blut einer Person/eines Tieres.
- (iv) Eine Methode zum Nachweis einer Kontamination in Fleisch,
Fleisch Produkten und Blut Produkten durch BSAS (SEQ ID: NO 1),
SCRAPAS (SEQ ID: NO 2) und CJAS (SEQ ID: NO 3) unter Verwendung einer
oder beider oben beschriebener ELISA Methoden zur Detektion entweder
des Prionins oder von Spuren eines Spezies-spezifischen anti-Prionin
IgGs in dem Testprodukt.
-
DIE MOLEKÜLE DER ERFINDUNG
-
BSAS,
SCRAPAS und CJAS („Prionine") sind kodiert und
exprimiert von innerhalb der bovinen, ovinen und humanen Prion Protein
Gene:
BSAS „SEQ
ID: NO 1" ist ein
9,6 kDa basisches Protein mit 19,75% Tryptophan (Trp) Resten, einer
Strecke von 22 Aminosäuren
(aa), die voraussichtlich eine positive DNA-Regulationseinheit ist,
welche das Protein als positiven DNA-Regulator klassifiziert. Die
Sekundärstruktur
von BSAS ist als fünf
(möglicherweise
sieben) aneinandergereihte β-Faltblatt/β-Wendung
organisiert. BSAS hat zwei Regionen mit signifikanter Homologie
zu Regionen im bovinen Prion Protein zwischen aa 90-150. Zur letztgenannten
Region wurde vorgeschlagen, dass sie an der Äthiologie von BSE bei Kühen beteiligt
ist. BSAS hat außerdem
eine auffallende Homologie zum Wachstumshormon-abgebenden Hormonrezeptor
(growth hormone releasing hormone receptor).
SCRAPAS „SEQ ID:
NO 2" ist ein 7,63
kDa basisches Protein. Es enthält
21, 87% Trp Reste und die zu der Einheit in BSAS identische voraussichtliche
positive DNA-Regulationseinheit. Die Sekundärstruktur von SCRAPAS ist als
vier oder fünf
gleichmäßig verteilte β-Faltblätter in
einem mit dem im BSAS fast identischen Muster organisiert. SCRAPAS
hat keine signifikante Homologieregion zum Haupt-Schaf-Prion Protein,
aber eine moderate Homologie zur oben beschriebenen Region (aa 90-150)
im bovinen Prion Protein.
CJAS „SEQ ID: NO 3" ist ein 7,7 kDa
basisches Protein. Es enthält
21,53% Trp Reste. CJAS hat eine Pro-reiche n-terminale Region und
eine Sequenz von 27 aa, die eine potentielle Transmembranhelix enthält und die das
Molekül
ans Transmembranprotein klassifiziert. Die Sekundärstruktur
von CJAS ist der von BSAS und SCRAPAS ähnlich und ist als vier aneinandergereihte β-Faltblätter, jeweils
getrennt durch eine β-Wendung, organisiert.
Das Protein hat eine Domäne
mit signifikanter Homologie zu einer Domäne im Malaria Parasit Merozoit
Membranprotein, von dem angenommen wird, dass es die Vakuolierung
von infizierten Erythrozyten fördert
und ihnen eine spongiforme Erscheinung verleiht (s. Dluzewski A.R.
et al. J. Cell Sci. 92: 691-699 (1989)).
MPAS „SEQ ID:
NO 4 ist ein 5,2 kDa neutrales Protein. Es enthält einen einzelnen Tryptophan
Rest (< 0,5%). Die
Sekundärstruktur
ist als drei gleichmäßig verteilte,
durch breite alpha-helikale Regionen getrennte β-Faltblättern organisiert. Es ist kein
Protein mit β-Faltblattstruktur.
HAMPAS „SEQ ID:
NO 5" ist ein 4,79
kDa basisches Protein. Es enthält
26% Tryptophan Reste. Es ist im Wesentlichen ein am N-Terminus verkürztes CJAS
Protein. Mit CJAS hat es ein antigenes Epitop gemeinsam. Die Sekundärstruktur
ist als drei aneinanderhängende β-Faltblätter organisiert,
die ähnlich
wie die β-Faltblätter 3, 4
und 5 von CJAS angeordnet sind.
-
KURZE BESCHREIBUNG DER ABBILDUNGEN
-
1a (SEQ ID: NO 1) ist die Aminosäuresequenz
von BSAS.
-
1b (SEQ ID: NO 2) ist die Aminosäuresequenz
von SCRAPAS.
-
1c (SEQ ID: NO 3) ist die Aminosäuresequenz
von CJAS.
-
1d (SEQ ID: NO 4) ist die Aminosäuresequenz
von MPAS.
-
1e (SEQ ID: NO 5) ist die Aminosäuresequenz
von HAMPAS.
-
2a-c zeigt die Sequenz der antigenen Epitope
von BSAS, SCRAPAS und CJAS. Das SCRAPAS Epitop kommt in BSAS vor
(13 von 14 Aminosäureresten
in BSAS und 9 von 14 Resten in CJAS); ein Teil des BSAS Epitops
kommt in SCRAPAS und CJAS vor.
-
3a ELISA
Nachweis von endogenem anti-BSAS IgG in Serum von BSE-positiven
und -negativen Rindern.
-
3b ELISA
Nachweis von endogenem anti-BSAS IgG in Serum von BSE-positiven,
BSE-negativen und klinisch negativen Rindern von Herden mit BSE-Fällen.
-
3c ELISA
Nachweis von endogenem anti-SCRAPAS IgG in Serum von Skrapie-positiven
und -negativen Schafen.
-
3d ELISA
Nachweis von endogenem anti-SCRAPAS IgG in Serum von Skrapie-positiven,
Skrapie-negativen und klinisch negativen Schafen, die Skrapie ausgesetzt
waren.
-
3e ELISA
Nachweis des CJAS Proteins in Serum von Patienten mit CJD und Patienten
mit anderen neurologischen Krankheiten.
-
3f ELISA
Nachweis von endogenem anti-CJAS IgG in Serum von CJD-Patienten
und Patienten mit einer Anzahl anderer neurologischer Krankheiten.
-
3g Immunoblot eines kationischen, nicht-SDS
Polyacrylamid Gels, welches das Vorkommen von BSAS und BSAS-Komplexen
mit anti-BSAS IgG im Serum einer Kuh mit BSE.
-
4 Sequenzen
der DNA-bindenden Domänen
von BSAS und SCRAPAS (die Sequenzen sind 100% homolog) und die Sequenz
der membranspannenden Alphahelix von CJAS.
-
5a Evolutionäre strukturelle Beziehung zwischen
BSAS, SCRAPAS, CJAS, HAMPAS und MPAS nach der Gruppenanalyse von
Prionen und Prioninen.
-
5b Die β-Faltblatt-Struktur-Charakteristika
von Prioninen.
-
DIE PHYSIOLOGISCHE ROLLE VON BSAS, SCRAPAS
UND CJAS IN DER NEUROPATHOLOGIE VON BSE, SKRAPIE UND CJD
-
BSAS,
SCRAPAS und CJAS („Prionine") werden von innerhalb
der jeweiligen Prion Protein Gene exprimiert (wie es auch für die Expression
von Leserahmenverschiebungs-Proteinen von innerhalb des humanen APP
Gens bei der Alzheimer Krankheit gezeigt wurde). Sie sind strukturell
nahe verwandt; allerdings scheint die Verwandtschaft nicht so nah
zu sein wie die zwischen den PrPs (s. Abbildung), die nicht nahe
verwandt mit den Prioninen sind (5a).
Prionine sind gänzlich β-Faltblatt-strukturierte
Proteine (5b). In dieser Hinsicht ähneln sie
Schlangen- und Skorpion-Toxinen
und einigen Insekten-Defensinen (Poren-bildende Proteine), die vornehmlich β-Faltblatt-Strukturen
aufweisen (Bontems F. et al. Science 254: 1521-1523 (1991)), unterscheiden
sich aber von diesen Proteinen, weil ihnen Cystin-Reste fehlen; allerdings
enthalten Prionine ~20 Trp Reste, was dafür spricht, dass sie in Zellmembranen
und anderen zellulären
lipidhaltigen Strukturen löslich sind.
Weiterhin werden in Prioninen die β-Faltblätter in regelmäßigen Abständen durch β-Wendungen
abgelöst,
und die Proteine sind, bis auf kurze Sequenzen am c-terminalen und
n-terminalen Ende, völlig
hydrophobe Moleküle;
diese strukturellen Eigenschaften sind ähnlich wie funktionelle Domänen von
Proteinen einer anderen Proteinfamilie, die mit anderen Proteinen
in Wechselwirkung treten und deren Struktur verändern (s. PZD und PTB Domänen, Zhou
H. et al. Nature Struct. Biol. 3: 388-393 (1996)).
-
Die
oben erwähnten
strukturellen Eigenschaften, die die Ähnlichkeit der Prionine mit
Familien pathogener, Membran-affiner Proteine anzeigen, weisen darauf
hin, dass Prionine pathogene Proteine sind. Dies wird untermauert
durch die krankheits-spezifische
Expression von BSAS, SCRAPAS und CJAS.
-
Poren-bildende
Proteine zerstören
Zellen, indem sie Löcher
in der Membran bilden (Peitsch M. et al. Mol. Immunol. 27: 589-602
(1990)). Im Zellzytoplasma aggregieren sie gewöhnlich und werden löslich. Zwar enthalten
weder BSAS noch SCRAPAS ein „komputer-definiertes" Transmembransignal,
weil sie aber hoch hydrophobe moleküle sind, imitieren sie möglicherweise
Poren-bildende Proteine, dadurch, dass sie mit Hilfe eines hauptsächlich aus
Trp bestehenden hydrophoben Keils in die Plasmamembran eindringen
(s. Hill H.P. et al. Science 251: 1481-1485 (1991)). Weiterhin spricht
die extrem hohe Konzentration an Tryptophan-Resten dafür, dass
Prionine Lipid-lösliche
Proteine sind.
-
Das
aktuelle Dogma besagt, dass PrPs zum infektiösen PrPsc wird, wenn die Sekundärstruktur
des PrP von der vorherrschenden Alphahelix zur β-Faltung „umkippt", und dass diese molekulare Veränderung
die Prionen veranlasst, die neuronale Membran zu verlassen und außerneuronal
zu akkumulieren (Darcel E. Vet. Res. Commun. 19: 231-252 (1995)).
Wie oben angedeutet, können
Prionin Proteine womöglich
an andere Proteine binden und die β-Faltblatt-Struktur auf diese übertragen.
Wie Poren-bildende Proteine können
Prionine auch das wechselwirkende Protein als Chaperon für den Transport
zu Membranflächen
in einer löslichen
Form nutzen. PrPs werden im lymphoretikulären System exprimiert und zum
Gehirn transportiert. Wie Prione werden Prionine bei allen TSE Krankheiten
gefunden. Weiterhin spricht die evolutionäre Beziehung zu Prionen (exprimiert
von den gleichen DNA-Sequenzen) und die Neigung von Proteinen, die
von den selben DNA-Sequenzen exprimiert werden, zur Bindungsbildung
(s.a. Baranyi L et al. Nature Medicine 1: 894-901 (1995)) dafür, dass Prionine
spezifische Moleküle
sind, die PrPc zu PrPsc konvertieren.
-
Expression von Prionin Proteinen
-
Wie
zuvor erwähnt,
sprechen bestimmte Beobachtungen dafür, dass BSE verursacht wird,
wenn Kühe fahrlässig mit
den Überresten
Skrapie-infizierter Schafe gefüttert
werden, und dass BSE auf den Menschen übertragen wird, wenn dieser
infiziertes Fleisch verzehrt, und dass die Infektion einen Krankheitsphänotyp verursacht,
der dem von CJD sehr ähnelt.
Die vorliegende Erfindung scheint diese Hypothese zu unterstützen, da diese
drei Krankheiten mit drei Spezies-spezifischen, einzigartigen Proteinen
verbunden sind, die potentiell mit jedem PrP interagieren können und
daher jede Zelle, in die sie eindringen, „infizieren" können.
-
BSAS
SEQ ID: NO 1, SCRAPAS SEQ ID: NO 2 and CJAS SEQ ID: NO 3 sind spezifisch
in mit BSE infizierten Kühen,
mit Skrapie infizierten Schafen und mit an CJD erkrankten Menschen
exprimiert alle drei Leserahmen öffnen
an identischen Translations-Initiationssequenzen.
BSAS und SCRAPAS sind positive DNA-bindende Proteine, die eine Anzahl
von Genen aktivieren können
und über
Speziesgrenzen hinweg infizieren können. Diese beiden Proteine
werden von alternativen Leserahmen innerhalb der Haupt-Priongene exprimiert.
Daher, wenn Kühe
SCRAPAS in aus Skrapie-infizierten Schafen hergestelltem Futter
fressen, kann eine falsche Bindung von SCRAPAS an ein PrP in den
Lymphozyten im Magen stattfinden, so dass SCRAPAS zum Gehirn transportiert
werden kann, wo es die Translation von BSAS aktivieren kann, welches
wiederum weitere Prione zur pathogenen Form konvertieren und daher
BSE in diesen Tieren initiieren kann. Wenn BSAS über die Nahrungskette in den
Menschen gelangt, kann es die Translation (oder Transcription) von
CJAS, das dieselbe Translations-Initiationssequenz hat wie BSAS
und SCRAPAS, aktivieren und die Symptome von CJD initiieren.
-
Von
den obigen Ausführungen
sollte deutlich werden, dass Prionine die Blut-Hirn-Schranke gebunden an
ein Chaperon passieren können.
Im Gehirn angelangt, können
sie mit gewöhnlich
von PrP besetzten neuronalen Membranbindestellen in Wechselwirkung
treten. Weiterhin können
Prionine, da sie Lipid-lösliche
Moleküle
sind, die Plasmamembran durchdringen, durch Lipidschichten diffundieren
und in Neuronen eindringen. Wir glauben, dass dies wie folgt, am
Beispiel von BSAS, ablaufen kann:
Das PrP Protein in der neuronalen
Plasmamembran ist entweder ein spezifischen oder ein opportunistisches Zielmolekül für Prionine.
BSAS, entweder endogen exprimiert oder von außen in eine Zelle eindringend,
interagiert mit PrPs. Beim Binden an das PrP zwingt die rigide β-Faltblattstruktur
von BSAS die flexible Konformation des PrP, sich in einer Weise
umzuformen, die die β-Faltblattstruktur
von BSAS beherbergt. Dies resultiert in der Bildung von Prionen
(s. Harrison S.C. Cell 86: 343-344 (1996)). Der lösliche BSAS-Prion
komplex durchwandert das Zytoplasma und verlässt die Zelle durch die Membran,
tritt in das lymphatische vesikuläre Transportsystem ein, in
dem er die Blut-Hirn-Schranke durchquert, und erreicht die Oberfläche einer
bestimmten Untergruppe von Neuronen, die gewöhnlich das Ziel für PrPs sind.
Beim Kontakt mit einem Neuron löst
sich BSAS vom Prion und dringt in die neuronale Membran ein. Das
Prion kann im konvertierten Zustand nicht in die Membran eintreten
und bleibt im intraneuronalen Raum zurück, wo die Aggregation mit
anderen verworfenen Prionen stattfindet. Alternativ kippt das PrP
beim Ablösen
von BSAS in den ursprünglichen
alpha-helikalen Zustand zurück.
Der Ereigniszyklus wird verstärkt
da in das Neuron eintretendes BSAS die Expression von PrPs überaktiviert.
-
Da
BSAS und SCRAPAS die identische positive DNA-Regulationssequenz, 4,
enthalten, aktivieren sie wahrscheinlich ein ähnliches Portfolio an Genen
und auto-aktivieren
ihre eigene Transcription oder Translation.
-
Alternativ
können
Prionine von einem 3' abwärts des
vermutlich für
die Expression des PrP zuständigen
Promotors befindlichen Promotorsystem exprimiert werden. Dagegen
werden PrPs in geeigneten Zellen lebenslang exprimiert und scheinen
essentielle Bestandteile von Neuronen zu sein, wenn auch ihre Funktion gegenwärtig nicht
bekannt ist (s. aber Schmerling et al. Cell 93: 203-214 (1998)).
Die Expression der Prionine, ihre Sezernierung und Zielrichtung
auf Neuronen und andere nicht-neuronale Zellen (spezifische oder
opportunistische Rezeptoren) geschieht wahrscheinlich nur in erkrankten
Tieren.
-
Die
Aussage, dass Prionine pathogen sind, erhielt Unterstützung durch
den Befund, dass Prionine an verschiedene Immunglobulin-Moleküle gebunden
im Blut aller klinisch BSE/Skrapie-positiven Tiere und bei CJD-erkrankten
Menschen auftrat. Der Antikörper
war auch bei einer signifikanten Anzahl klinisch negativer Tiere
vorhanden, die aber BSE oder Skrapie ausgesetzt waren. Der endogene
Antikörper
wurde nie bei nicht BSE/Skrapie-exponierten Tieren oder klinisch
normalen Personen ohne Kontakt mit CJD gefunden. Dies spricht dafür, dass
das Immunsystem von Tieren und Menschen die Prionine als fremd erachtete
und versuchte, wenn sie exprimiert wurden, sie zu neutralisieren.
Die Immunantwort auf Prionine ist unter Umständen äußerst wichtig für die Kontrolle
der TSE Krankheiten, insbesondere für die Kontrolle von Kreuzinfektionen.
Sie ist auch wichtig für
den Nachweis von Latenz, und offensichtlich für die präsymptomatische Diagnose von
TSE Krankheiten. Weiterhin erscheint es möglich, dass die Prionin-Expression
initiiert werden kann, wenn geeignete Zellen Umweltgiften ausgesetzt
werden (z.B. mikrobielle oder viröse Infektion, intrezelluläre giftige
metabolische Nebenprodukte, oder Stress). Die Wirkung solcher Infektionen
könnte
erstens darin bestehen, dass sie das Immunsystem derart belastet,
dass es andere Aufgaben nicht effizient genug bewältigen kann,
und zweitens darin, dass das infektiöse Agens die Expression des
Prionins aktiviert. Dies bewirkt eine geringere Effektivität des Immunsystems
und ermöglicht,
dass Prionine sich ihm entziehen, in Zellen eindringen und mit PrPs in
Wechselwirkung treten.
-
Zusammenfassend
treten Prionine als Poren-bildende Proteine auf oder liegen gebunden
an Prione in Neuronen vor, zerstören
die Lipidschicht und dringen in Neuronen ein, wo sie die Expression
einer Anzahl von Genen aktivieren, einschließlich des PrP- und des Prionin-Gens.
Prionin Moleküle,
die auf oder in der Membran verweilen, regen das neuronale Immunsystem
an. Dieses Immunsystem ist gegen Zellen gerichtet, die das Prionin
Molekül
enthalten und zerstören
daher selektiv diese das Prionin tragenden Zellen, was den Charakterzug
einer Autoimmunreaktion gegen endogene Neuronen annimmt. Da dieses
Autoimmun-Geschehen selektiv gegen Zellen gerichtet ist, die auf
ihrer Oberfläche
Prionine tragen, bleiben umgebende Zellen größtenteils unberührt. Das
Ergebnis ist die vakuolierte, schwammartige Erscheinung des TSE
Gehirns.
-
DIE NUTZUNG DER MOLEKÜLE DER VORLIEGENDEN
ERFINDUNG
-
A. Diagnostische Nutzung
-
Da
BSAS, SEQ ID: NO 1, SCRAPAS, SEQ ID: NO 2 und CJAS, SEQ ID: NO 3,
bei normalen Tieren oder Menschen nicht in nachweisbaren Mengen
exprimiert werden, ist der Nachweis dieser Moleküle in einer Gewebe- oder Flüssigkeitsprobe
(wie z.B. einer Biopsie oder Blut-, Urin- oder Speichelprobe) indikativ
für die Krankheit
in dem Tier bzw. der Person, sogar bevor irgendwelche klinischen
Symptome vorhanden sind. Beispiel 6: 103 gemischte Blindproben,
die aus Blut, Serum und Urin bestanden, wurden mit dem in 3a gezeigten
ELISA Test untersucht. Alle Proben von klinisch positiven Tieren
waren positiv für
BSAS oder SCRAPAS, alle klinisch negative Tiere, die nie BSE oder
Skrapie ausgesetzt waren, testeten negativ für BSAS oder SCRAPAS, während bis
zu 30% der klinisch negativen Tiere, die BSE ausgesetzt waren, positiv
testeten. Letztere Tiere waren präsymptomatisch für die Krankheit.
-
Wir
haben empfindliche Sandwich ELISA Technologie zum Nachweis von BSAS,
SCRAPAS und CJAS in Kuh-, Schaf- und Menschen-Material eingesetzt,
wie auch für
den Nachweis von Latenz und Kreuzkontamination bei Tieren, Nahrungsmitteln
und Blutprodukten; der Nachweis dieser Moleküle kann aber auch mit verschiedenen
anderen immunologischen Methoden erfolgen; geeignete Immunoassay-Formate
wurden zahlreich beschrieben (Yolken R.H. Rev. Infect. Dis. 4: 35
(1982); Collins W.P. In: Alternative Immunoassays, John Wiley & Sons, NY (1985);
Ngo T.T. et al. In: Enzyme Mediated Immunoassay, Plenum Press, NY
(1985)).
-
Beispiel
7: Der gegen das Epitop im Hamster Prionin HAMPAS, SEQ ID: NO 5,
gerichtete Antikörper kann
für den
Nachweis von CJAS verwendet werden. An Stelle solcher Antikörper können äquivalente
Bindemoleküle
verwendet werden, wie z.B. Antikörper-Fragmente
(F(ab'), F(ab')2, Einzelketten-Antikörper etc.),
rekombinante Antikörper,
chimere Antikörper
etc.
-
Wie
oben angedeutet können
in Immunoassay-Formaten markierte Antikörper eingesetzt werden, um den
Nachweis zu erleichtern. Radioisotopen-Immunoassays („RIAs") haben den Vorteil,
einfach, empfindlich und leicht ausführbar zu sein. Radioaktive
Markierungen haben relativ kleine atomare Dimensionen, weshalb sie
gewöhnlich
nicht die Reaktionskinetik beeinflussen. Aufgrund des radioaktiven
Zerfalls leiden solche Assays aber unter dem Nachteil, dass die
Reagenzien eine kurze Lebensdauer haben, dass eine spezielle Handhabung
und Entsorgung nötig
ist und dass der Gebrauch einer komplizierten und teuren analytischen
Ausrüstung
erforderlich ist. RIAs sind beschrieben von Work T.S. et al. In:
Laboratory Techniques and Biochemistry in Molecular Biology, North
Holland Publishing Company, NY (1978), mit besonderem Hinweis auf
den Absatz mit dem Titel „An
Introduction to Radioimmune Assay and Related Techniques" von Chard T.. Es
gibt nicht ein einzelnes Enzym, das ideal als Markierung in jedem
erdenklichen immunometrischen Assay wäre. Stattdessen muss man bestimmen,
welches Enzym für
ein bestimmtes Testsystem geeignet ist. Für die Auswahl eines Enzyms
wichtige Kriterien sind die Umsatzzahl (turnover number) des reinen
Enzyms (die Anzahl Substratmoleküle,
die pro Enzymstelle und Zeiteinheit umgesetzt werden), die Reinheit
der Enzympräparation,
die Nachweisempfindlichkeit des Produktes, die Leichtigkeit und
Schnelligkeit des Nachweises der Enzymreaktion, die Abwesenheit von
Störfaktoren
oder von enzym-ähnlicher
Aktivität
in der Probeflüssigkeit,
die Stabilität
des Enzyms und seiner Konjugate, die Erhältlichkeit und die Kosten für das Enzym
und seine Konjugate, und ähnliches.
Beispiele von geeigneten und brauchbaren Enzymen sind neben vielen
anderen Peroxidase, Acetylcholin-Esterase, alpha-Glyzerinphosphat
Dehydrogenase, Alkalische Phosphatase, Asparaginase, β-Galactosidase
und Catalase. Peroxidase und Urease gehören zu den mehr bevorzugten
Enzymmarkierungen, insbesondere wegen chromogener pH-Indikatoren,
die ihre Aktivität
schon dem bloßen
Auge sichtbar machen.
-
B. Therapeutische Nutzung
-
Es
ist von Bedeutung, dass die gegenwärtige Erfindung Hilfsmittel
für die
Behandlung von BSE, Skrapie und CJD liefert. Die Behandlung kann „prophylaktisch" oder „therapeutisch" sein. Eine prophylaktische
Behandlung wird im Vorwege zu irgendwelchen klinischen Symptomen
von BSE, Skrapie oder CJD zur Verfügung gestellt, um den späteren Beginn
der Krankheit zu verhindern oder abzuschwächen. Eine therapeutische Behandlung
wird in Reaktion auf den Beginn von Symptomen von BSE, Skrapie oder
CJD angewendet und dient dazu, die aktuellen Krankheitssymptome
abzuschwächen.
-
In
einer Verdeutlichung kommt so eine Behandlung dadurch zustande,
dass behandlungsbedürftigen Tieren
oder Menschen eine wirkungsvolle Menge eines Antikörpers, eines
Antikörper-Fragments (F(ab'), F(ab')2, Einzelketten-Antikörper) oder
einer Kombination von beiden, die an BSAS, SCRAPAS oder CJAS binden
können,
verabreicht wird. Hierbei ist eine wirkungsvolle Menge eine Menge,
die ausreicht, einen klinisch signifikanten Unterschied im Schweregrad
eines Symptoms, oder eine klinisch signifikante Verzögerung des Beginns
eines Symptoms zu erwirken.
-
Für eine akute
Behandlung mag die Verabreichung von monospezifischen polyklonalen
oder von monoklonalen Antikörpern
(oder von Fragmenten dieser beiden) wertvoll sein. Der Einsatz von
nicht-immunogenen Antikörpern
ist aber vorzuziehen, was insbesondere für die chronische Anwendung
gilt. Solche Moleküle können pseudo-homolog
sein (d.h. produziert in irgendeiner Spezies und zu einer Form verändert, die
sich nicht von der humanen Form unterscheidet). Beispiele solcher
pseudo-homologer Moleküle
schließen „humanisierte" ein (d.h. nicht-immunogen
beim Menschen), die durch Rekombinations- oder andere Technologie
hergestellt werden. Solche Antikörper
sind Äquivalente
von monoklonalen und polyklonalen Antikörpern, sind aber weniger immunogen
und werden vom Patienten besser toleriert.
-
Humanisierte
anti-CJAS Antikörper
können
z.B. durch Ersetzen eines immunogenen Teils jedes Antikörpers durch
einen nicht-immunogenen Teil (d.h. chimere Antikörper) hergestellt werden (Robinson
R.R. et al. Internationale Patentveröffentlichung PCT/US86/02269;
Akira K. et al. Europäische
Patentanmeldung 184,187; Taniguchi M. Europäische Patentanmeldung 171,496;
Morrison S.L. et al. Europäische
Patentanmeldung 173,494; Neuberger M.S. et al. PCT Anmeldung WO
86/01533; Cabilly S. et al. Europäische Patentanmeldung 125,023;
Better M. et al. Science 240: 1041-1043 (1988); Liu A.Y. et al.
Proc. Natl. Acad. Sci. USA 84: 3439-3443 (1987); Liu A.Y. et al.
J. Immunol. 139: 3521-3526 (1987); Sun L.K. et al. Proc. Natl. Acad.
Sci. USA 84: 214-218 (1987); Nishimura Y. et al. Cancer Res. 47:
999-1005 (1987); Wood C.R. et al. Nature 314: 446-449 (1985); Shaw
et al. J. Natl. Cancer Inst. 80: 1553-1559 (1988)). Allgemeine Reviews über "humanisierte" chimere Antikörper wurden
von Morrison S.L. (Science 229: 1202-1207 (1985)) und von Oi V.T.
et al. (BioTechniques 4: 214 (1986)) verfasst. Geeignete „humanisierte" Antikörper können alternativ
auch durch CDR oder CEA hergestellt werden (Jones P.T. et al. Nature
321: 552-525 (1986); Verhoeyan et al. Science 239: 1534 (1988);
Beidler C.B. et al. J. Immunol. 141: 4053-4060 (1988)).
-
D. Verabreichung der Moleküle der vorliegenden
Erfindung
-
Zusätzliche
pharmazeutische Methoden können
zur Kontrolle der Einwirkzeit eingesetzt werden. Präparationen
zur kontrollierten Abgabe können
durch den Einsatz von Polymeren zur Komplexierung oder Absorption
des Mittels erreicht werden. Die kontrollierte Zuführung kann
durch die Wahl geeigneter Makromoleküle (z.B. Polyester, Polyaminosäuren, Polyvinylpyrrolidon, Äthylenvinylazetat,
Methycellulose, Carbosymethylcellulose oder Protaminsulfat) und
der Konzentration der Makromoleküle,
wie auch der Verabreichungsmethoden zur Kontrolle der Krankheit
ausgeübt
werden.
-
Nach
dieser allgemeinen Beschreibung der Erfindung durch Referenzen und
Beispiele, die dem leichteren Verständnis für Jedermann mit ausreichender
Fachkenntnis dienen, muss hier darauf hingewiesen werden, dass die
Erfindung hierdurch nicht eingeschränkt werden sollen, es sei denn,
es ist ausdrücklich
erwähnt.
-
Die
Erfindung wird durch die Patentansprüche definiert.
-
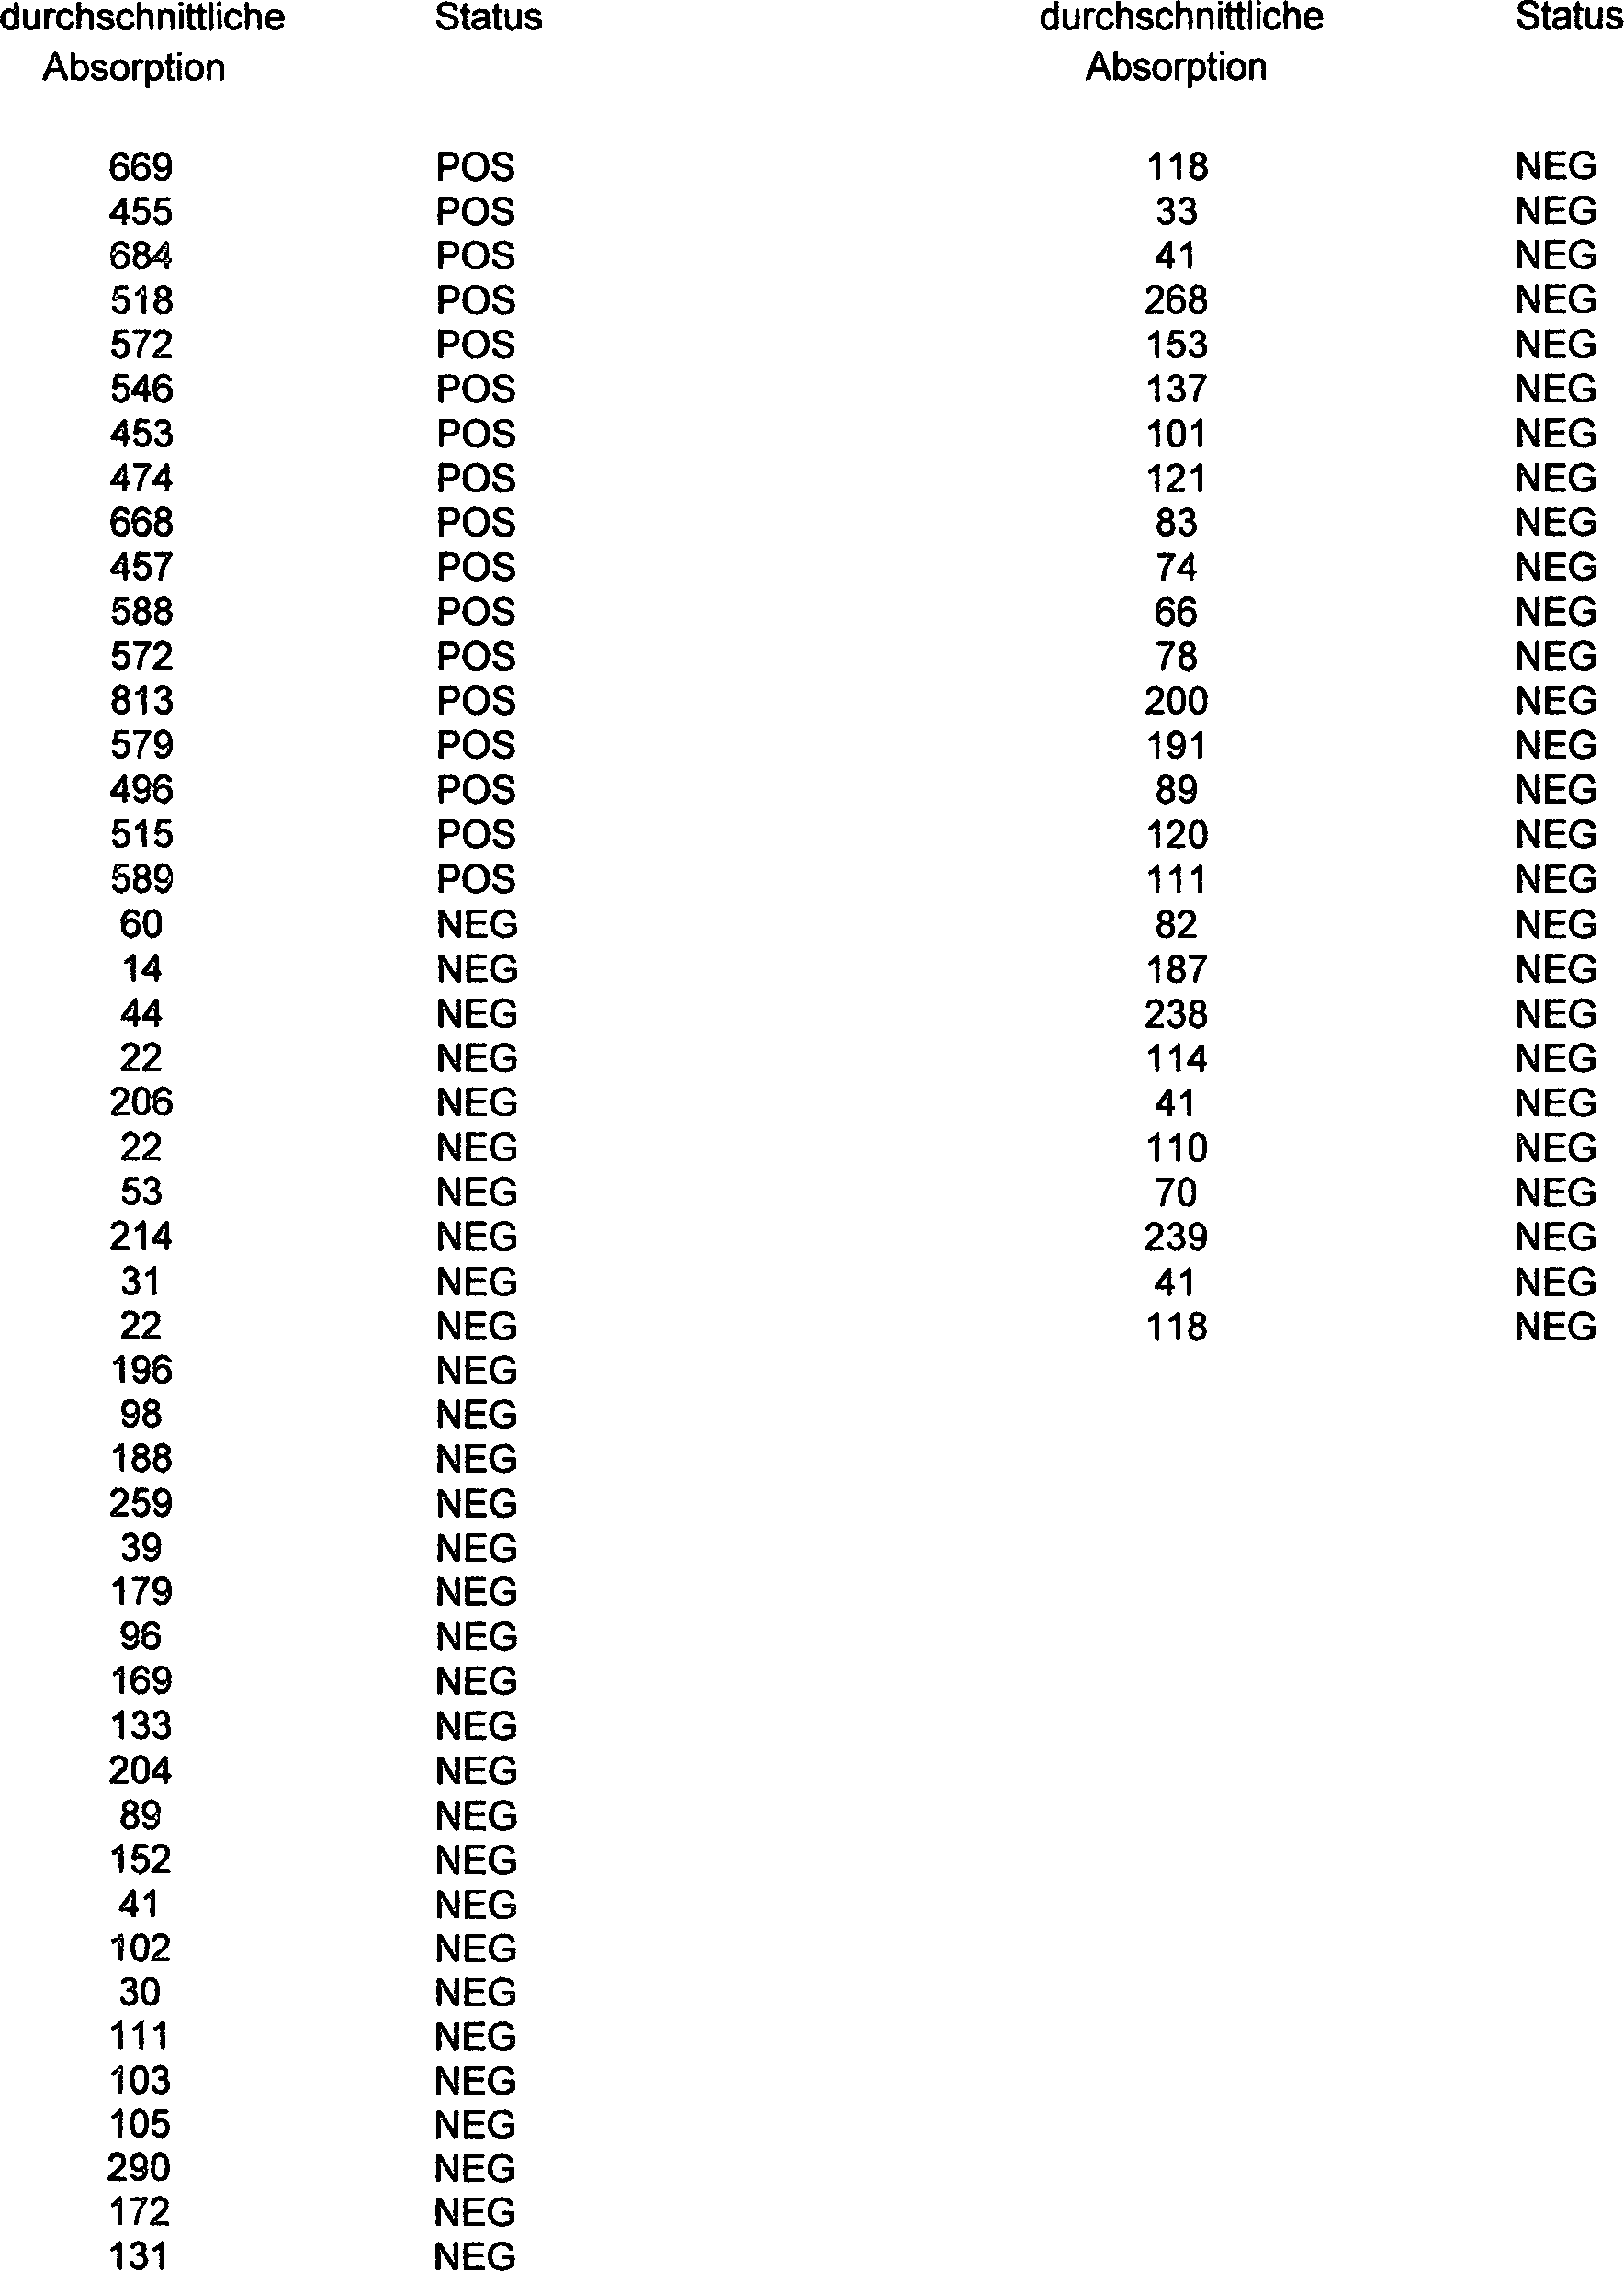
TABELLEN
-
Tabelle 1
-
Antigen-Einfang ELISA Testergebnisse mit
Blut und Urin von Kühen
und Schafen mit BSE bzw. Skrapie.
-
BSE dia, Skrapie
-
-
- dia
- = klinische Diagnose
von Tieren
- cv
- = Herde aus einem
EU-Land
- neg
- = keine sichtbaren
BSE-Symptome aber Herden mit BSE/Skrapie ausgesetzt
- pos
- = klinische BSE-Symptome
- nz
- = Testmaterial direkt
von einem Skrapie/BSE-freien Land erhalten
- can 43-83
- = Plasma von „40" kanadischen Kühen, die
nie BSE ausgesetzt waren
- *
- = alle Proben testeten
im ELISA negativ
-
Tabelle 2.1 & 2.2
-
Antikörper-Einfang
ELISA Testergebnisse mit Serum erhalten von Skrapie-positiven Schafen
und mit Serum erhalten von Skrapie-negativen Schafen von einer Herde,
die nie Skrapie ausgesetzt war.
-
Tabelle 3
-
Antikörper-Einfang
ELISA Testergebnisse mit Serum erhalten von BSE-positiven Kühen und
von BSE-negativen Kühen
die nie BSE ausgesetzt waren.
-
LEGENDEN ZU DEN ABBILDUNGEN
-
1a-e
-
Die
von der Sequenz der mRNA abgeleiteten Aminosäurensequenzen der Prionine
BSAS, SCRAPAS, CJAS, MPAS und HAMPAS.
-
2
-
Sequenz
der für
die Herstellung polyklonaler Antikörper benutzten antigenen Epitope.
Die Epitope wurden mit einer Festphasentechnologie chemisch synthetisiert,
mit HPLC gereinigt und an Key Hole Limpet Hämocyanin gekoppelt. IgG wrude
von Immunseren an CN-Sepharose gekoppeltem Epitop durch Affinitäts-Säulenchromatographie
gereinigt.
-
3
-
- (a) Nachweis von endogenem anti-BSAS IgG in
BSE-positiven Kühen,
aber nicht in gut charakterisierten BSE-negativen Kühen (Platten
mit BSAS benetzt und gebundener Antikörper mit anti-bovinem IgG.HRP detektiert).
- (b) Nachweis von endogenem anti-BSAS IgG in Serum abgenommen
von Kühen
mit klinischer BSE, klinisch normalen Kühen einer Herde mit einem BSE-Fall
und klinisch negative, nicht BSE-exponierten Kühen.
- (c) Nachweis von endogenem anti-SCRAPAS IgG in Serum abgenommen
von Skrapie-positiven Schafen, aber nicht in Serum abgenommen von
Schafen, die nie Skrapie ausgesetzt waren (Platten mit SCRAPAS benetzt
und anti-SCRAPAS Antikörper
wurde detektiert mit anti-Schaf IgG.HRP).
- (d) Nachweis von endogenem anti-SCRAPAS IgG in Serum von Schafen
mit klinischer Skrapie, in Serum fon klinisch normalen Schafen von
einer Herde mit mehreren Skrapie-Fällen und in Serum von Schafen,
die nie Skrapie ausgesetzt waren.
- (e) Nachweis von CJAS in Serum abgenommen von zwei an CJD erkrankten
Personen, aber nicht bei einer normalen Person oder bei Patienten
mit anderen neurologischen Zuständen
(Platten wurden mit anti-SCRAPAS IgG benetzt, und CJAS wurde mit
anti-CJAS IgG.HRP detektiert; 1 = physiologische Alterung, 2 = diffuse
Lewy Körper,
3 = Parkinson, 4 = CJD, 5 = CJD und Alzheimer Krankheit, 6 = Epilepsie,
7 = Dementia vom gemischten Typ).
- (f) Nachweis von endogenem anti-CJAS IgG in Serum von zwei CJD
Patienten, aber nicht in Serum von 33 klinisch normalen Personen
und Personen mit verschiedenen neurodegenerativen Zuständen (CJAS
wurde an die ELISA Wells gebunden, und gebundenes endogenes anti-CJAS
IgG wurde mit Fc-spezifischem anti-human IgG.HRP detektiert); 2 & 34 = CJD, 20
= Alzheimer Krankheit, 1, 3-19, 21-33 & 35 = Normale und andere Krankheiten.
- (g) Das Vorkommen von BSAS und BSAS komplexiert mit IgG Fragmenten
im Serum isoliert von einer BSE-positiven Kuh. 50 μl des Serums
wurden mit kationeischer nicht-SDS PAGE elektrophoretisiert und
auf eine Nylonmembran geblottet. Das Blot wurde mit anti-BSAS IgG
behandelt, und die Gegenwart von anti-BSAS Antikörpern komplexiert mit BSAS
wurde mit einem Maus anti-Kaninchen IgG.HRP, gekoppelt mit einem
Chemilumineszenzsubstrat, und nachfolgender Röntgenfilm-Exposition detektiert.
In einem anderen, nicht gezeigten Experiment wurde BSAS in der den
Komplex enthaltenden Bande identifiziert.
-
4
-
Sequenz
a-b des positiven DNA-Regulators von BSAS und SCRAPAS und c der
Membran-spannenden Helix von CJAS.
-
5
-
Evolutions-Beziehung
zwischen den Prioninen BSAS, SCRAPAS und CJAS, MPAS und HAMPAS; zwischen
bovinem PrP, Schaf-PrP, humanem PrP, Maus-PrP und Hamster-PrP.
-
6
-
Die β-Faltblatt-Wahrscheinlichkeit
(„propensity") der Prionine.
-
-
-
-
-
-
-
-
-
-