EP1537194B1 - Procede de preparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante - Google Patents
Procede de preparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante Download PDFInfo
- Publication number
- EP1537194B1 EP1537194B1 EP03769562A EP03769562A EP1537194B1 EP 1537194 B1 EP1537194 B1 EP 1537194B1 EP 03769562 A EP03769562 A EP 03769562A EP 03769562 A EP03769562 A EP 03769562A EP 1537194 B1 EP1537194 B1 EP 1537194B1
- Authority
- EP
- European Patent Office
- Prior art keywords
- hydrolysis
- lipase
- fatty acids
- homogenization
- seeds
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Lifetime
Links
- 150000002632 lipids Chemical class 0.000 title claims description 102
- 235000014113 dietary fatty acids Nutrition 0.000 title claims description 71
- 239000000194 fatty acid Substances 0.000 title claims description 71
- 229930195729 fatty acid Natural products 0.000 title claims description 71
- 150000004665 fatty acids Chemical class 0.000 title claims description 69
- 238000000034 method Methods 0.000 title claims description 56
- 238000011065 in-situ storage Methods 0.000 title claims description 21
- 230000003301 hydrolyzing effect Effects 0.000 title claims description 5
- 238000006460 hydrolysis reaction Methods 0.000 claims description 120
- 230000007062 hydrolysis Effects 0.000 claims description 112
- 102000004882 Lipase Human genes 0.000 claims description 106
- 108090001060 Lipase Proteins 0.000 claims description 106
- 239000004367 Lipase Substances 0.000 claims description 106
- 235000019421 lipase Nutrition 0.000 claims description 106
- 238000000265 homogenisation Methods 0.000 claims description 70
- 239000000839 emulsion Substances 0.000 claims description 66
- XLYOFNOQVPJJNP-UHFFFAOYSA-N water Substances O XLYOFNOQVPJJNP-UHFFFAOYSA-N 0.000 claims description 30
- 239000012071 phase Substances 0.000 claims description 19
- 239000012736 aqueous medium Substances 0.000 claims description 18
- 239000000725 suspension Substances 0.000 claims description 17
- 239000002245 particle Substances 0.000 claims description 15
- 239000000243 solution Substances 0.000 claims description 15
- 239000002904 solvent Substances 0.000 claims description 14
- 238000001035 drying Methods 0.000 claims description 7
- 238000011084 recovery Methods 0.000 claims description 6
- 239000002253 acid Substances 0.000 claims description 5
- 150000001298 alcohols Chemical class 0.000 claims description 5
- 239000002960 lipid emulsion Substances 0.000 claims description 5
- 150000002148 esters Chemical class 0.000 claims description 4
- 239000007790 solid phase Substances 0.000 claims description 4
- 150000005677 organic carbonates Chemical class 0.000 claims description 3
- 150000002576 ketones Chemical class 0.000 claims description 2
- 150000007513 acids Chemical class 0.000 claims 1
- 239000002609 medium Substances 0.000 description 63
- 238000000527 sonication Methods 0.000 description 48
- 238000006243 chemical reaction Methods 0.000 description 32
- 230000008569 process Effects 0.000 description 26
- 238000000605 extraction Methods 0.000 description 25
- 240000002791 Brassica napus Species 0.000 description 24
- 102000004190 Enzymes Human genes 0.000 description 23
- 108090000790 Enzymes Proteins 0.000 description 23
- 238000012360 testing method Methods 0.000 description 23
- 210000004027 cell Anatomy 0.000 description 21
- 230000000694 effects Effects 0.000 description 21
- 239000007787 solid Substances 0.000 description 20
- 235000004977 Brassica sinapistrum Nutrition 0.000 description 19
- 238000005119 centrifugation Methods 0.000 description 19
- 239000003921 oil Substances 0.000 description 19
- 235000019198 oils Nutrition 0.000 description 19
- 239000007788 liquid Substances 0.000 description 18
- 230000009257 reactivity Effects 0.000 description 18
- 238000002604 ultrasonography Methods 0.000 description 18
- 238000000227 grinding Methods 0.000 description 16
- HEDRZPFGACZZDS-UHFFFAOYSA-N Chloroform Chemical compound ClC(Cl)Cl HEDRZPFGACZZDS-UHFFFAOYSA-N 0.000 description 14
- OAICVXFJPJFONN-UHFFFAOYSA-N Phosphorus Chemical compound [P] OAICVXFJPJFONN-UHFFFAOYSA-N 0.000 description 14
- 241000222175 Diutina rugosa Species 0.000 description 12
- VEXZGXHMUGYJMC-UHFFFAOYSA-N Hydrochloric acid Chemical compound Cl VEXZGXHMUGYJMC-UHFFFAOYSA-N 0.000 description 12
- 230000003993 interaction Effects 0.000 description 12
- 238000002360 preparation method Methods 0.000 description 12
- 238000011282 treatment Methods 0.000 description 12
- 230000007071 enzymatic hydrolysis Effects 0.000 description 11
- 238000006047 enzymatic hydrolysis reaction Methods 0.000 description 11
- 239000000463 material Substances 0.000 description 11
- 235000018102 proteins Nutrition 0.000 description 11
- 102000004169 proteins and genes Human genes 0.000 description 11
- 108090000623 proteins and genes Proteins 0.000 description 11
- IJGRMHOSHXDMSA-UHFFFAOYSA-N Atomic nitrogen Chemical compound N#N IJGRMHOSHXDMSA-UHFFFAOYSA-N 0.000 description 10
- 229910052698 phosphorus Inorganic materials 0.000 description 10
- 239000011574 phosphorus Substances 0.000 description 10
- 239000012429 reaction media Substances 0.000 description 10
- LFQSCWFLJHTTHZ-UHFFFAOYSA-N Ethanol Chemical compound CCO LFQSCWFLJHTTHZ-UHFFFAOYSA-N 0.000 description 9
- PEDCQBHIVMGVHV-UHFFFAOYSA-N Glycerine Chemical compound OCC(O)CO PEDCQBHIVMGVHV-UHFFFAOYSA-N 0.000 description 9
- 125000005456 glyceride group Chemical group 0.000 description 9
- 239000000523 sample Substances 0.000 description 9
- 239000000758 substrate Substances 0.000 description 9
- 239000000203 mixture Substances 0.000 description 8
- 241000196324 Embryophyta Species 0.000 description 7
- HEMHJVSKTPXQMS-UHFFFAOYSA-M Sodium hydroxide Chemical compound [OH-].[Na+] HEMHJVSKTPXQMS-UHFFFAOYSA-M 0.000 description 7
- 239000003795 chemical substances by application Substances 0.000 description 7
- OKKJLVBELUTLKV-UHFFFAOYSA-N Methanol Chemical compound OC OKKJLVBELUTLKV-UHFFFAOYSA-N 0.000 description 6
- 210000002421 cell wall Anatomy 0.000 description 6
- VLKZOEOYAKHREP-UHFFFAOYSA-N n-Hexane Chemical compound CCCCCC VLKZOEOYAKHREP-UHFFFAOYSA-N 0.000 description 6
- 239000008188 pellet Substances 0.000 description 6
- 238000003756 stirring Methods 0.000 description 6
- 235000011293 Brassica napus Nutrition 0.000 description 5
- GRYLNZFGIOXLOG-UHFFFAOYSA-N Nitric acid Chemical compound O[N+]([O-])=O GRYLNZFGIOXLOG-UHFFFAOYSA-N 0.000 description 5
- 230000009471 action Effects 0.000 description 5
- 238000004364 calculation method Methods 0.000 description 5
- 230000000052 comparative effect Effects 0.000 description 5
- 150000001875 compounds Chemical class 0.000 description 5
- 239000000470 constituent Substances 0.000 description 5
- 235000013305 food Nutrition 0.000 description 5
- 125000004383 glucosinolate group Chemical group 0.000 description 5
- 230000000670 limiting effect Effects 0.000 description 5
- 229910017604 nitric acid Inorganic materials 0.000 description 5
- 229910052757 nitrogen Inorganic materials 0.000 description 5
- 150000003626 triacylglycerols Chemical class 0.000 description 5
- 239000002956 ash Substances 0.000 description 4
- 230000015572 biosynthetic process Effects 0.000 description 4
- 239000007853 buffer solution Substances 0.000 description 4
- 238000004821 distillation Methods 0.000 description 4
- 230000005764 inhibitory process Effects 0.000 description 4
- 238000004519 manufacturing process Methods 0.000 description 4
- MEFBJEMVZONFCJ-UHFFFAOYSA-N molybdate Chemical compound [O-][Mo]([O-])(=O)=O MEFBJEMVZONFCJ-UHFFFAOYSA-N 0.000 description 4
- 150000003904 phospholipids Chemical class 0.000 description 4
- 239000000047 product Substances 0.000 description 4
- LSGOVYNHVSXFFJ-UHFFFAOYSA-N vanadate(3-) Chemical compound [O-][V]([O-])([O-])=O LSGOVYNHVSXFFJ-UHFFFAOYSA-N 0.000 description 4
- 238000005303 weighing Methods 0.000 description 4
- XDTMQSROBMDMFD-UHFFFAOYSA-N Cyclohexane Chemical compound C1CCCCC1 XDTMQSROBMDMFD-UHFFFAOYSA-N 0.000 description 3
- 235000010469 Glycine max Nutrition 0.000 description 3
- 229910019142 PO4 Inorganic materials 0.000 description 3
- 238000004458 analytical method Methods 0.000 description 3
- 239000008346 aqueous phase Substances 0.000 description 3
- 238000003556 assay Methods 0.000 description 3
- 230000033228 biological regulation Effects 0.000 description 3
- 230000033558 biomineral tissue development Effects 0.000 description 3
- 230000003197 catalytic effect Effects 0.000 description 3
- 230000001413 cellular effect Effects 0.000 description 3
- 239000012153 distilled water Substances 0.000 description 3
- 238000001704 evaporation Methods 0.000 description 3
- 230000008020 evaporation Effects 0.000 description 3
- 238000005259 measurement Methods 0.000 description 3
- 238000000386 microscopy Methods 0.000 description 3
- 230000004044 response Effects 0.000 description 3
- 239000004576 sand Substances 0.000 description 3
- 239000011734 sodium Substances 0.000 description 3
- 230000006641 stabilisation Effects 0.000 description 3
- 238000011105 stabilization Methods 0.000 description 3
- 238000009210 therapy by ultrasound Methods 0.000 description 3
- 238000004448 titration Methods 0.000 description 3
- 238000001238 wet grinding Methods 0.000 description 3
- 244000068988 Glycine max Species 0.000 description 2
- 238000007696 Kjeldahl method Methods 0.000 description 2
- 235000019484 Rapeseed oil Nutrition 0.000 description 2
- FAPWRFPIFSIZLT-UHFFFAOYSA-M Sodium chloride Chemical compound [Na+].[Cl-] FAPWRFPIFSIZLT-UHFFFAOYSA-M 0.000 description 2
- 238000002835 absorbance Methods 0.000 description 2
- 239000003513 alkali Substances 0.000 description 2
- XAGFODPZIPBFFR-UHFFFAOYSA-N aluminium Chemical compound [Al] XAGFODPZIPBFFR-UHFFFAOYSA-N 0.000 description 2
- 229910052782 aluminium Inorganic materials 0.000 description 2
- 238000004581 coalescence Methods 0.000 description 2
- 238000009833 condensation Methods 0.000 description 2
- 230000005494 condensation Effects 0.000 description 2
- 230000001186 cumulative effect Effects 0.000 description 2
- 238000010908 decantation Methods 0.000 description 2
- 235000021245 dietary protein Nutrition 0.000 description 2
- 238000002474 experimental method Methods 0.000 description 2
- 230000006872 improvement Effects 0.000 description 2
- 230000003834 intracellular effect Effects 0.000 description 2
- 239000000314 lubricant Substances 0.000 description 2
- 238000003760 magnetic stirring Methods 0.000 description 2
- 239000012074 organic phase Substances 0.000 description 2
- 230000008092 positive effect Effects 0.000 description 2
- 238000005070 sampling Methods 0.000 description 2
- 239000004094 surface-active agent Substances 0.000 description 2
- 238000003786 synthesis reaction Methods 0.000 description 2
- 108010058651 thioglucosidase Proteins 0.000 description 2
- LENZDBCJOHFCAS-UHFFFAOYSA-N tris Chemical compound OCC(N)(CO)CO LENZDBCJOHFCAS-UHFFFAOYSA-N 0.000 description 2
- OOSZCNKVJAVHJI-UHFFFAOYSA-N 1-[(4-fluorophenyl)methyl]piperazine Chemical compound C1=CC(F)=CC=C1CN1CCNCC1 OOSZCNKVJAVHJI-UHFFFAOYSA-N 0.000 description 1
- WPDXAMRGYMDTOV-UHFFFAOYSA-N 3-bromo-2-methylphenol Chemical compound CC1=C(O)C=CC=C1Br WPDXAMRGYMDTOV-UHFFFAOYSA-N 0.000 description 1
- 241000588986 Alcaligenes Species 0.000 description 1
- 241000228212 Aspergillus Species 0.000 description 1
- FRPHFZCDPYBUAU-UHFFFAOYSA-N Bromocresolgreen Chemical compound CC1=C(Br)C(O)=C(Br)C=C1C1(C=2C(=C(Br)C(O)=C(Br)C=2)C)C2=CC=CC=C2S(=O)(=O)O1 FRPHFZCDPYBUAU-UHFFFAOYSA-N 0.000 description 1
- 241000222120 Candida <Saccharomycetales> Species 0.000 description 1
- YCKRFDGAMUMZLT-UHFFFAOYSA-N Fluorine atom Chemical compound [F] YCKRFDGAMUMZLT-UHFFFAOYSA-N 0.000 description 1
- 241001536352 Fraxinus americana Species 0.000 description 1
- 235000002918 Fraxinus excelsior Nutrition 0.000 description 1
- 241000447437 Gerreidae Species 0.000 description 1
- 241000223198 Humicola Species 0.000 description 1
- NHTMVDHEPJAVLT-UHFFFAOYSA-N Isooctane Chemical compound CC(C)CC(C)(C)C NHTMVDHEPJAVLT-UHFFFAOYSA-N 0.000 description 1
- 241000446313 Lamella Species 0.000 description 1
- FYYHWMGAXLPEAU-UHFFFAOYSA-N Magnesium Chemical compound [Mg] FYYHWMGAXLPEAU-UHFFFAOYSA-N 0.000 description 1
- 241001465754 Metazoa Species 0.000 description 1
- 241000235395 Mucor Species 0.000 description 1
- 229910021204 NaH2 PO4 Inorganic materials 0.000 description 1
- 241000228143 Penicillium Species 0.000 description 1
- 102000035195 Peptidases Human genes 0.000 description 1
- 108091005804 Peptidases Proteins 0.000 description 1
- 241000589516 Pseudomonas Species 0.000 description 1
- 241000235527 Rhizopus Species 0.000 description 1
- 235000004443 Ricinus communis Nutrition 0.000 description 1
- NINIDFKCEFEMDL-UHFFFAOYSA-N Sulfur Chemical compound [S] NINIDFKCEFEMDL-UHFFFAOYSA-N 0.000 description 1
- QAOWNCQODCNURD-UHFFFAOYSA-N Sulfuric acid Chemical compound OS(O)(=O)=O QAOWNCQODCNURD-UHFFFAOYSA-N 0.000 description 1
- 241000223257 Thermomyces Species 0.000 description 1
- 208000024799 Thyroid disease Diseases 0.000 description 1
- 238000013019 agitation Methods 0.000 description 1
- 239000007864 aqueous solution Substances 0.000 description 1
- OGBUMNBNEWYMNJ-UHFFFAOYSA-N batilol Chemical class CCCCCCCCCCCCCCCCCCOCC(O)CO OGBUMNBNEWYMNJ-UHFFFAOYSA-N 0.000 description 1
- 230000008901 benefit Effects 0.000 description 1
- FFBHFFJDDLITSX-UHFFFAOYSA-N benzyl N-[2-hydroxy-4-(3-oxomorpholin-4-yl)phenyl]carbamate Chemical compound OC1=C(NC(=O)OCC2=CC=CC=C2)C=CC(=C1)N1CCOCC1=O FFBHFFJDDLITSX-UHFFFAOYSA-N 0.000 description 1
- 230000005540 biological transmission Effects 0.000 description 1
- 238000004061 bleaching Methods 0.000 description 1
- KGBXLFKZBHKPEV-UHFFFAOYSA-N boric acid Chemical compound OB(O)O KGBXLFKZBHKPEV-UHFFFAOYSA-N 0.000 description 1
- 239000004327 boric acid Substances 0.000 description 1
- 239000000872 buffer Substances 0.000 description 1
- 150000001735 carboxylic acids Chemical class 0.000 description 1
- 230000015556 catabolic process Effects 0.000 description 1
- 239000003054 catalyst Substances 0.000 description 1
- 230000006037 cell lysis Effects 0.000 description 1
- 230000008859 change Effects 0.000 description 1
- 238000012512 characterization method Methods 0.000 description 1
- 230000007073 chemical hydrolysis Effects 0.000 description 1
- 239000011362 coarse particle Substances 0.000 description 1
- 238000000576 coating method Methods 0.000 description 1
- 230000006957 competitive inhibition Effects 0.000 description 1
- 239000012141 concentrate Substances 0.000 description 1
- 239000000356 contaminant Substances 0.000 description 1
- 238000001816 cooling Methods 0.000 description 1
- 239000002537 cosmetic Substances 0.000 description 1
- 230000006837 decompression Effects 0.000 description 1
- 238000006731 degradation reaction Methods 0.000 description 1
- 230000006866 deterioration Effects 0.000 description 1
- 238000001784 detoxification Methods 0.000 description 1
- 238000011161 development Methods 0.000 description 1
- 230000018109 developmental process Effects 0.000 description 1
- BNIILDVGGAEEIG-UHFFFAOYSA-L disodium hydrogen phosphate Chemical compound [Na+].[Na+].OP([O-])([O-])=O BNIILDVGGAEEIG-UHFFFAOYSA-L 0.000 description 1
- 229910000397 disodium phosphate Inorganic materials 0.000 description 1
- 239000006185 dispersion Substances 0.000 description 1
- 238000009837 dry grinding Methods 0.000 description 1
- 238000005265 energy consumption Methods 0.000 description 1
- 230000002255 enzymatic effect Effects 0.000 description 1
- 238000006911 enzymatic reaction Methods 0.000 description 1
- 238000011066 ex-situ storage Methods 0.000 description 1
- 238000011049 filling Methods 0.000 description 1
- 238000001914 filtration Methods 0.000 description 1
- 229910052731 fluorine Inorganic materials 0.000 description 1
- 239000011737 fluorine Substances 0.000 description 1
- 230000004927 fusion Effects 0.000 description 1
- 235000021189 garnishes Nutrition 0.000 description 1
- 238000004817 gas chromatography Methods 0.000 description 1
- 230000035784 germination Effects 0.000 description 1
- 238000005469 granulation Methods 0.000 description 1
- 230000003179 granulation Effects 0.000 description 1
- 230000036541 health Effects 0.000 description 1
- 238000010438 heat treatment Methods 0.000 description 1
- XLYOFNOQVPJJNP-ZSJDYOACSA-N heavy water Substances [2H]O[2H] XLYOFNOQVPJJNP-ZSJDYOACSA-N 0.000 description 1
- 238000005984 hydrogenation reaction Methods 0.000 description 1
- 239000012535 impurity Substances 0.000 description 1
- 230000002401 inhibitory effect Effects 0.000 description 1
- JEIPFZHSYJVQDO-UHFFFAOYSA-N iron(III) oxide Inorganic materials O=[Fe]O[Fe]=O JEIPFZHSYJVQDO-UHFFFAOYSA-N 0.000 description 1
- 230000002427 irreversible effect Effects 0.000 description 1
- 230000004130 lipolysis Effects 0.000 description 1
- 239000000395 magnesium oxide Substances 0.000 description 1
- CPLXHLVBOLITMK-UHFFFAOYSA-N magnesium oxide Inorganic materials [Mg]=O CPLXHLVBOLITMK-UHFFFAOYSA-N 0.000 description 1
- AXZKOIWUVFPNLO-UHFFFAOYSA-N magnesium;oxygen(2-) Chemical compound [O-2].[Mg+2] AXZKOIWUVFPNLO-UHFFFAOYSA-N 0.000 description 1
- 230000007246 mechanism Effects 0.000 description 1
- 239000012528 membrane Substances 0.000 description 1
- 230000002503 metabolic effect Effects 0.000 description 1
- CEQFOVLGLXCDCX-WUKNDPDISA-N methyl red Chemical compound C1=CC(N(C)C)=CC=C1\N=N\C1=CC=CC=C1C(O)=O CEQFOVLGLXCDCX-WUKNDPDISA-N 0.000 description 1
- 244000005700 microbiome Species 0.000 description 1
- 238000003801 milling Methods 0.000 description 1
- 238000002156 mixing Methods 0.000 description 1
- 235000008390 olive oil Nutrition 0.000 description 1
- 239000004006 olive oil Substances 0.000 description 1
- -1 on the one hand Chemical class 0.000 description 1
- 230000003287 optical effect Effects 0.000 description 1
- 238000005457 optimization Methods 0.000 description 1
- 230000008520 organization Effects 0.000 description 1
- 239000003973 paint Substances 0.000 description 1
- 230000003071 parasitic effect Effects 0.000 description 1
- NBIIXXVUZAFLBC-UHFFFAOYSA-K phosphate Chemical compound [O-]P([O-])([O-])=O NBIIXXVUZAFLBC-UHFFFAOYSA-K 0.000 description 1
- 239000010452 phosphate Substances 0.000 description 1
- 239000008363 phosphate buffer Substances 0.000 description 1
- 239000000843 powder Substances 0.000 description 1
- 239000002244 precipitate Substances 0.000 description 1
- 102000004196 processed proteins & peptides Human genes 0.000 description 1
- 108090000765 processed proteins & peptides Proteins 0.000 description 1
- 238000012545 processing Methods 0.000 description 1
- 230000002829 reductive effect Effects 0.000 description 1
- 238000009877 rendering Methods 0.000 description 1
- 238000012958 reprocessing Methods 0.000 description 1
- 230000000717 retained effect Effects 0.000 description 1
- 230000002441 reversible effect Effects 0.000 description 1
- 230000035945 sensitivity Effects 0.000 description 1
- 238000000926 separation method Methods 0.000 description 1
- 230000035939 shock Effects 0.000 description 1
- 239000000344 soap Substances 0.000 description 1
- 239000011780 sodium chloride Substances 0.000 description 1
- 229940074545 sodium dihydrogen phosphate dihydrate Drugs 0.000 description 1
- WZWGGYFEOBVNLA-UHFFFAOYSA-N sodium;dihydrate Chemical compound O.O.[Na] WZWGGYFEOBVNLA-UHFFFAOYSA-N 0.000 description 1
- 235000012424 soybean oil Nutrition 0.000 description 1
- 239000003549 soybean oil Substances 0.000 description 1
- 238000001256 steam distillation Methods 0.000 description 1
- 229910052717 sulfur Inorganic materials 0.000 description 1
- 239000011593 sulfur Substances 0.000 description 1
- 150000003464 sulfur compounds Chemical class 0.000 description 1
- 230000001988 toxicity Effects 0.000 description 1
- 231100000419 toxicity Toxicity 0.000 description 1
- 230000009466 transformation Effects 0.000 description 1
- 230000001960 triggered effect Effects 0.000 description 1
- 238000011144 upstream manufacturing Methods 0.000 description 1
- 235000015112 vegetable and seed oil Nutrition 0.000 description 1
- 238000005406 washing Methods 0.000 description 1
- 238000003809 water extraction Methods 0.000 description 1
Images




Classifications
-
- C—CHEMISTRY; METALLURGY
- C11—ANIMAL OR VEGETABLE OILS, FATS, FATTY SUBSTANCES OR WAXES; FATTY ACIDS THEREFROM; DETERGENTS; CANDLES
- C11C—FATTY ACIDS FROM FATS, OILS OR WAXES; CANDLES; FATS, OILS OR FATTY ACIDS BY CHEMICAL MODIFICATION OF FATS, OILS, OR FATTY ACIDS OBTAINED THEREFROM
- C11C1/00—Preparation of fatty acids from fats, fatty oils, or waxes; Refining the fatty acids
- C11C1/02—Preparation of fatty acids from fats, fatty oils, or waxes; Refining the fatty acids from fats or fatty oils
- C11C1/04—Preparation of fatty acids from fats, fatty oils, or waxes; Refining the fatty acids from fats or fatty oils by hydrolysis
- C11C1/045—Preparation of fatty acids from fats, fatty oils, or waxes; Refining the fatty acids from fats or fatty oils by hydrolysis using enzymes or microorganisms, living or dead
-
- C—CHEMISTRY; METALLURGY
- C11—ANIMAL OR VEGETABLE OILS, FATS, FATTY SUBSTANCES OR WAXES; FATTY ACIDS THEREFROM; DETERGENTS; CANDLES
- C11B—PRODUCING, e.g. BY PRESSING RAW MATERIALS OR BY EXTRACTION FROM WASTE MATERIALS, REFINING OR PRESERVING FATS, FATTY SUBSTANCES, e.g. LANOLIN, FATTY OILS OR WAXES; ESSENTIAL OILS; PERFUMES
- C11B1/00—Production of fats or fatty oils from raw materials
- C11B1/02—Pretreatment
- C11B1/025—Pretreatment by enzymes or microorganisms, living or dead
-
- C—CHEMISTRY; METALLURGY
- C11—ANIMAL OR VEGETABLE OILS, FATS, FATTY SUBSTANCES OR WAXES; FATTY ACIDS THEREFROM; DETERGENTS; CANDLES
- C11B—PRODUCING, e.g. BY PRESSING RAW MATERIALS OR BY EXTRACTION FROM WASTE MATERIALS, REFINING OR PRESERVING FATS, FATTY SUBSTANCES, e.g. LANOLIN, FATTY OILS OR WAXES; ESSENTIAL OILS; PERFUMES
- C11B1/00—Production of fats or fatty oils from raw materials
- C11B1/02—Pretreatment
- C11B1/04—Pretreatment of vegetable raw material
Definitions
- the present invention relates to the field of the preparation of fatty acids from the lipids contained in the seeds of certain plants.
- Fatty acids are carboxylic acids with varying degrees of unsaturation and a wide variety of molecular weights. Fatty acids are used in the manufacture of a wide variety of products, such as soaps and surfactants, lubricants, paints and coatings, and candles, as well as in a wide variety of other consumer products. agriculture and industry, particularly in the agri-food sector.
- fatty acids are produced by chemical hydrolysis of an oil, for example by the action of heat and pressure in the presence of water, in order to break the bonds between the acid and the alcohol constituting the lipids contained in the oils.
- the US patent published under number US 5,932,458 discloses a method of hydrolyzing an oil with an immobilized lipase.
- the lipase can be obtained by grinding oat seeds and then removing the lipids by extraction with a solvent.
- the immobilized lipase is then placed in contact with soybean oil in a solvent. organic, 2,2,4-trimethylpentane.
- RAO et al. ( RAO KSVA et al., 1992, Res. Ind., Vol.37: 36 ) describe a method of hydrolysis using castor seed mill, in which endogenous lipase of the seed, which is released from intracellular spheronomas by seed milling, is used to hydrolyze the endogenous lipids of these milled seeds.
- JACHMANLAN et al. Jachmanian I et al., 1995, J Agric. Food Chem. flight. 43 (11): 2992-2996 ) studied the hydrolysis of lipids of a crushed seed rapeseed under the action of endogenous lipase.
- US Patent No. US 3,640,725 discloses a process for preparing a protein extract from soybeans.
- the method of this prior document comprises in particular a step of incubating a paste obtained from crushed soybeans with a proteolytic enzyme composition.
- the applicant has endeavored to develop an improved process for preparing fatty acids, by hydrolysis of the lipids contained in the seeds of a plant, which is simple, fast, and which allows obtaining a high yield hydrolysis.
- the applicant has endeavored to develop an improved process that does not require a step of extracting the oil prior to bringing the lipase into contact with the lipids whose hydrolysis, respectively in fatty acids and alcohols, is sought after.
- an exogenous lipase placed in a solid / liquid heterogeneous substrate reaction medium which reaction medium is subjected to a drastic homogenization treatment at high pressure or by ultrasound, retains its catalytic activity. hydrolysis of the lipids contained in the substrate solution thus treated.
- an exogenous lipase was capable of carrying out a complete or almost complete hydrolysis of the lipids present in this heterogeneous solid / liquid reaction medium in the form of an emulsion consisting of droplets of oil dispersed in an aqueous medium, and that the fatty acids resulting from the hydrolysis of the lipids contained in said emulsion could be easily recovered, for example by simple extraction.
- step a) grinding is carried out using a knife mill type "Waring Blendor" in an aqueous medium.
- obtaining solid particles with an average diameter of less than 500 ⁇ m can be obtained by a grinding time of the seeds in the aqueous medium of a few minutes, preferably between 1 and 10 minutes and very preferably between 2 and 7 minutes, for example for a period of 5 minutes.
- a buffer solution is not preferred because a buffer solution is likely to introduce undesirable contaminants compounds that are difficult or long to eliminate, in the following process.
- the seeds are added to the aqueous medium at a proportion of less than 20%, preferably less than 15%, by total weight of the aqueous medium containing the seeds.
- step a) of grinding is difficult or impossible to achieve because of a too high viscosity of the aqueous medium.
- step e) of recovery of fatty acids is difficult to achieve optimally, due to a proportion of solid phase too high.
- the proportion by weight of seeds, relative to the total weight of the aqueous medium containing the seeds is less than 15%.
- the exogenous lipase, added in step b) in the heterogeneous liquid / solid suspension obtained at the end of step a), may be of any kind. It may be a lipase obtained from microorganisms of the genera Rhizopus, Mucor, Alcaligenes, Candida, Aspergillus, Pseudomonas, Humicola, Thermomyces or Penicillium or from the lipases of plants.
- the lipase obtained from Candida rugosa can be used, as described in the examples.
- the exogenous lipase is added in a proportion of 100 to 500 units, preferably 150 to 400 units of lipase, per gram of the weight of the seeds treated in step a).
- One unit of lipase corresponds to the amount of lipase required to release 1 ⁇ mol of fatty acid from glyceride per minute under optimal conditions of catalytic activity of the enzyme.
- lipid hydrolysis For higher lipase / seed ratios, the kinetics of hydrolysis is further enhanced and the hydrolysis of lipids is almost complete. Thus, a degree of lipid hydrolysis greater than 90% is obtained with a lipase / seed ratio of 166 units of lipase per gram of weight of seeds treated in step a).
- step c) the homogenization of the liquid / solid suspension initially containing coarse particles of seeds less than 500 ⁇ m is carried out until a homogenate consisting of a lipid emulsion initially contained in the seeds, mixed with the solid particles of the seeds.
- Step c) of homogenizing the heterogeneous liquid / solid suspension and containing the exogenous lipase may be carried out by any means known per se.
- step c) of homogenization is carried out by homogenization under pressure or by homogenization by sonication.
- step c) by homogenization under pressure, it is possible to use a high-pressure homogenizer such as the Lab 1000 type homogenizer marketed by the APV Company (Evreux, France), according to the manufacturer's recommendations.
- a high-pressure homogenizer such as the Lab 1000 type homogenizer marketed by the APV Company (Evreux, France), according to the manufacturer's recommendations.
- the homogenization under pressure is carried out at a pressure of between 25 and 1000 bar, preferably between 100 and 500 bar, for example at 150 bar.
- the pressure jump caused in the middle produces a shock wave contributing to the disintegration of the seed cells and disperses the lipids contained in the seed.
- step c) of homogenization will be carried out by two successive cycles of homogenization under pressure.
- the homogenization step c) can be carried out by 1 to 4 cycles of passage in a high pressure homogenizer, optimal results are obtained with two cycles of high pressure homogenization. In this case, the extraction yield of the fatty acids at the end of the process is increased without drastically affecting the activity of the exogenous lipase.
- step c) of homogenizing the suspension containing the exogenous lipase may be carried out by sonication of said suspension until a homogenate consisting of an emulsion of the lipids initially contained in the seeds is obtained. , mixed with the solid particles of the seeds.
- the suspension solid particles to which the exogenous lipase has been added is treated with ultrasound at a power greater than 20 Watts.
- the frequency of ultrasound does not seem to be an essential parameter of treatment.
- ultrasonic power of between 20 and 200 Watts is used, and most preferably between 20 and 100 Watts.
- the duration of the homogenization step by sonication is advantageously between 10 seconds and 10 minutes, preferably between 30 seconds and 5 minutes.
- a sonication duration of 30 seconds at the power of 64 Watts average kinetics of lipid hydrolysis was observed leading to a degree of hydrolysis after 120 minutes of reaction greater than 85%.
- a sonication time of 1 minute considerably improves the reaction kinetics and a degree of hydrolysis greater than 90% is reached after 120 minutes of reaction.
- the degrees of hydrolysis of the lipids obtained at the end of the process are comparable. They are generally greater than 95% under the optimum conditions indicated above.
- the results obtained in the examples show that the final extraction yield of the fatty acids resulting from the hydrolysis of the lipids is substantially the same, that the step c) of homogenization was carried out by homogenization under pressure or else by homogenization by sonication.
- step c) shows that this homogenate is formed of lipid droplets which aggregate into small clusters forming an emulsion, the homogenate also containing many solid debris seeds, including seed shell debris as well as cellular debris.
- the size of the fat drops is on average between 5 and 15 ⁇ m and their surface appears thin and smooth, which suggests that the stabilization of the oil / water interface of the droplets does not involve solid particles.
- the homogenate contains the lipids initially contained in the seeds in the form of a liquid / liquid emulsion with the water present in the aqueous medium that constitutes said homogenate.
- Step d) of hydrolysis of the lipids contained in the homogenate obtained in step c) is carried out by incubating the homogenate at a temperature of between 15 ° C. and 55 ° C. for a period of time between 15 minutes and 5 hours.
- the exogenous lipase catalyzes the hydrolysis reaction of the lipids, in particular triglycerides, contained in the form of a liquid / liquid emulsion in the homogenate, respectively in the different constituent fatty acids of said lipids, on the one hand , and various alcohols, especially glycerol, with which said fatty acids were esterified in the spheroids of seeds.
- the method for preparing fatty acids by in situ hydrolysis of the invention can therefore be carried out at ambient temperature without requiring heating of the reaction medium consisting of the homogenate obtained in step c), which makes this process easy to implementation and also inexpensive.
- step d) of hydrolysis at low temperature, for example between 20 ° C. and 30 ° C., makes it possible to avoid, or at least reduce, the simultaneous hydrolysis of other compounds.
- other compounds such as glucosinolates, whose sulfur hydrolysis products cause thyroid disorders in humans and animals.
- myrosinase which is the enzyme responsible for the hydrolysis of glucosinolates, is not very active, the optimal catalytic activity of this enzyme being between 40 ° C and 70 ° C. ° C.
- step d) of hydrolysis makes the process of the invention particularly useful. simple to perform, since no precise regulation of the reaction temperature is required.
- the duration of step d) of hydrolysis of the lipids can be adapted as a function of the chosen reaction temperature. However, it can be optimally performed for a period of between 60 and 120 minutes at a reaction temperature equal to or greater than 27 ° C.
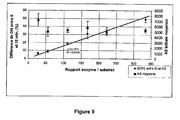
- the method for preparing fatty acids by in situ hydrolysis of the lipids contained in the seeds of a plant above is highly reproducible. It has been shown that the difference in degree of hydrolysis between 0 and 15 minutes of reaction varies linearly with the exogenous lipase / weight weight ratio of the seeds.
- Step c) homogenization makes it possible in fact to physically break the macroscopic structure of the seeds and to release into the aqueous medium lipids initially contained in the spherosomes, which are intracellular vesicles surrounded by a membrane.
- the lipase is located on the entire surface of the oil / water interface of the lipid droplets generated which allows a rapid and as complete hydrolysis of said lipid substrates as possible. which are easily accessible to the enzyme.
- Step e) of recovering the fatty acids resulting from the hydrolysis of the lipids made in step d) can be carried out by any lipid extraction method known to those skilled in the art.
- the fatty acids are separated from the other constituents of the homogenate obtained in step d) by obtaining a liquid medium with three phases, respectively a solid phase, a phase aqueous solution and a lipid emulsion phase, by centrifugation of the homogenate, and then recovery of the lipid emulsion phase.
- Obtaining the three-phase liquid medium is preferably carried out by centrifugation of the heterogeneous liquid / solid reaction medium at the end of the hydrolysis step d). If necessary, several successive centrifugations can be carried out in order to improve the yield of the process.
- a triphasic medium is obtained respectively comprising (i) a solid pellet essentially comprising solid debris from seeds, cell shells or debris, (ii) an aqueous phase and (iii) an oily phase under the shape of an emulsion.
- the oily phase in the form of an emulsion constitutes the phase enriched in fatty acids resulting from the hydrolysis of the lipids initially contained in the seeds.
- This oily phase represents about 7 to 10% by weight of the total weight of the reaction medium obtained at the end of the hydrolysis step d).
- the oily emulsion phase is separated from the other two phases respectively aqueous and solid, for example by simple sampling on the surface of the three-phase medium obtained after centrifugation.
- the oily emulsion fractions are combined in order to proceed to step e2) of extracting the fatty acids with a solvent.
- the extraction of the fatty acids is carried out with a solvent chosen from water, an alcohol, an ester, an organic carbonate or a ketone.
- Water is preferably used for the extraction of fatty acids in the form of an emulsion.
- Ethanol is preferably used for the extraction of fatty acids and the production of concentrates, as well as for the subsequent conversion of fatty acids to ethylenic esters, for various applications, in particular in solvents, lubricants and cosmetics. , curators, etc ...
- An ester or an organic carbonate is preferably used for the subsequent transformation of fatty acids, in situ or ex situ.
- the solvent precipitates the proteins and phospholipids contained in the emulsion and solubilizes the fatty acids.
- the fraction of precipitated compounds and the solubilized fatty acid fraction can be easily separated, for example by centrifugation.
- the solvent used is ethanol, which may for example be added to the emulsion containing the fatty acids in a proportion of 1.5 to 2 volumes of ethanol per volume of emulsion.
- Step e2) of extracting the fatty acids from the emulsion with the aid of a solvent is advantageously followed by a step e3) of drying the extraction solution containing the fatty acids.
- the drying step can be carried out by simple evaporation, at atmospheric pressure or under vacuum until complete drying of the fatty acids is achieved.
- the drying step e3) may be a moderate drying step in which only the solvent is removed, the residual aqueous medium being retained.
- step e3) of the process the quality of the fatty acids obtained at the end of the process is the best, because the water retains any impurities such as peptides soluble in alcohol. or traces of phospholipids.
- the rapeseeds are added with water in order to obtain the proportions 1: 8 in masses, respectively.
- This mixture is then poured into a household mixer type "Warring Blendor". The grinding is then carried out for 5 minutes, taking care to return to the bottom of the bowl the particles that adhere to the walls.
- the lipase resulting from Candida rugosa (Lipolyve, Lyven, Cagny, France) is solubilized in water so as to obtain a concentration of 10 mg / ml.
- Ninety grams of the previously obtained seed mill material is supplemented with 10 grams of enzyme solution in a 150 ml jacketed beaker. At this stage, the medium contains 10% by weight of rapeseeds and a quantity of lipase corresponding to 300 UL / g of seeds.
- the mixture obtained after dry grinding or in the presence of water is then treated with ultrasound (Vibracell, Bioblock Scientific, Illkirch, France) for 5 minutes at 59 W (70% of active period).
- the medium is cooled during the sonication by circulation of cold water in the wall of the beaker. After this step, the flow of cold water is immediately replaced by that coming from a bath thermostated at 37 ° C.
- the medium is then allowed to evolve under magnetic stirring (250 rpm) for 120 minutes.
- the reaction is monitored by a series of sampling made at predetermined times. In these, 1.5 ml of medium are transferred to a tube containing 1 ml of hydrochloric acid and 5 ml of chloroform.
- the lipase is added to the medium after grinding the seeds for 5 minutes in the presence of water.
- the sonication step is replaced by two homogenization cycles by a Lab 1000 homogenizer (APV, Evreux, France) equipped with two homogenization stages.
- the pressure of the first homogenization stage is set at 150 bar, that of the second stage is set at 20 bar, in agreement with the results published by Wäsche et al (1993) and with the supplier's recommendations.
- the seed content of the medium is 13.5% by weight and the lipase / seed ratio is set at 333 UL / g of seeds, in order to be able to compare the measured kinetics with those already obtained before with the use of ultrasound.
- the stopwatch is triggered at the addition of the lipase, just before the start of the passage of the medium in the homogenizer.
- Obtaining a DH of the order of 95% in 2 hours clearly shows that the homogenization is capable of generating adequate conditions for the enzymatic hydrolysis in situ of rapeseed lipids. It would have been possible that the violence of the treatment suffered by the medium degrades the lipase, rendering it inactive. Moreover, the tests of this new material were carried out without any optimization.
- the measured hydrolysis rate therefore does not a priori represent an optimum of reactivity, and the range of possible homogenization pressures for the apparatus used is fairly wide. Thus, it is possible to vary the homogenization pressure, but also the number of passes made or the pressure of the second homogenization stage.
- One liter of medium at 15% by mass is prepared by passage of 5 minutes in the 150g mixer of rapeseed in 850mL of H 2 O. After passing through the mixer, the amount of medium recovered is weighed in order to estimate the quantity seed (15% of the recovered mass).
- the hydrolysis is carried out with the enzyme "LIPOLYVE CC" whose concentration is 30 units / mg.
- the enzyme solution is prepared in water in order to obtain, after mixing with the medium, an enzyme concentration of the order of 300 units per gram of seeds and a concentration of seeds in the medium of the order of 13.5% by weight.
- the enzyme solution is added to the medium and the whole is passed to the homogenizer 2 cycles at 350 bars.
- the homogenate (medium passed to the homogenizer) thus recovered is placed in a reactor at 37 ° C. with stirring at 250 rpm for two hours.
- the hydrolyzate (homogenate after 2 hours of hydrolysis at 37 ° C.) is finally stored at 4 ° C.
- Emulsion recovery protocol :
- the emulsion is prepared from the hydrolyzate by centrifugation. After stirring, the hydrolyzate is centrifuged for 5 minutes at maximum speed. During the last emulsion preparation, the hydrolyzate was centrifuged for 5 minutes at 7600 G. During the centrifugation, the different phases are separated and it is possible to recover the emulsion by filtration on a fine mesh. The pellet is then resuspended in the aqueous phase before being centrifuged a second time under the same conditions. The emulsion formed is thus recovered two more times.
- the determination of the dry matter makes it possible to calculate the quantity of water contained in the emulsion.
- the amount of dry matter is calculated by weighing a certain volume of emulsion (about 4 ml) before and after passing 6 hours in an oven at 103 ° C. To avoid losses of emulsion by projections, the weighed emulsion volume is mixed with sand before being placed in an oven. To avoid losses, the weighing is carried out with the aluminum cup containing the emulsion, with the sand and with the spatula used to mix the sand and the emulsion.
- the amount remaining after 6 hours at 103 ° C represents the dry matter.
- the difference in weight gives us information on the quantity of water contained in the emulsion.
- the amount of fatty acids resulting from the hydrolysis of the triglycerides of the lipids of the crushed seeds is expected by the oil.
- the oil content of our emulsion is determined according to a "simplified method by hexane extraction" (Standard V 03-908). For safety reasons, cyclohexane and not hexane were used.
- This content is determined on the dry matter that allowed us to calculate the amount of water contained in the emulsion. To avoid distorting the results, the aluminum cup containing the dry matter and the spatula were placed in the soxhlet cartridge.
- Oil content m 1 - m 0 / m trial x 100 m 0 : tare of the balloon in grams m 1 : balloon mass after evaporation of cyclohexane in grams m test : mass of emulsion, in grams, used to obtain the dry matter
- Oil content d ⁇ e l ' ed ⁇ m ⁇ u ⁇ l ⁇ s ⁇ i ⁇ o ⁇ not 58 , 3 + ⁇ / - ⁇ 1 , 3 %
- the determination of the proteins contained in the emulsion is done indirectly by nitrogen determination according to the Kjeldahl method: mineralization and steam distillation.
- Phosphorus content PO 4 2 x 0.05 x 100 / m [PO 4 2- ]: Phosphorus concentration of dissolved ash in mg / mL m: mass of the test sample in grams Content p ⁇ h ⁇ o ⁇ s ⁇ p ⁇ h ⁇ o ⁇ r ⁇ e d ⁇ e l ' ed ⁇ m ⁇ u ⁇ l ⁇ s ⁇ i ⁇ o ⁇ not : 0 , 148 + ⁇ / - ⁇ 0 , 004 %
- the emulsion is composed of: ... 32.5% H 2 O + / - 0.6% 58.3% oil + / - 1.3% 7.24% protein + / - 0.47% 3.8% phospholipids + /. 0.1%
- the emulsion had a density of 0,943 + / - 0.004%
- the media used to carry out these tests are obtained by homogenization under pressure or by homogenization by sonication, as indicated in Examples 1 and 2.
- the homogenization by sonication was carried out by continuous sonication at the power of 82 W.
- the pellet is weighed before being completed with distilled water until the initial mass of treated medium. The whole is then homogenized by vigorous stirring for 30 seconds. This new suspension is then treated as the initial medium by centrifugation and then extraction of the fat from the higher phases to the solvent. In total, 4 cycles are carried out in this manner, the last pellet obtained being also extracted with chloroform and methanol after being resuspended in 15 ml of distilled water. A report on lipids can be made.
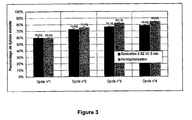
- the cumulative percentage of total lipids extracted after each wash cycle is presented on the figure 3 .
- the comparison of the results obtained for a hydrolysis involving sonication or homogenization shows us an identical lipid extractability during the first cycle.
- the total percentage of lipids extracted in subsequent cycles is significantly higher if the medium has undergone pressure homogenization treatment. Indeed, a difference of 6.5% is observed on the total yield.
- the preparation of the hydrolysis media by grinding followed by homogenization makes it possible to significantly improve the total yield of extraction of the fatty acids produced during the reaction.
- the difference measured after 4 cycles of washing / centrifugation is 6.5%.
- the extractibility observed after the first aqueous extraction cycle suggests that the interactions between the emulsion droplets and the cell debris of the pellet are of the same order in the case of the use of ultrasound or homogenization. under pressure.
- the proportion of seeds introduced into the medium directly conditions the degree of filling of the reactor with a glyceride substrate. Indeed, when increasing the seed content of the medium, it is logically enriched in glycerides and proteins, which represent respectively 46.5 and 18% of the fresh mass of rapeseeds used. the quantity of seeds in the medium has been varied within the limits of the possibilities of the material.
- the response measured during this study is the evolution of the degree of hydrolysis (DH) over time.
- the reaction kinetics measurement protocol is performed using wet milling as a pretreatment step prior to sonication.
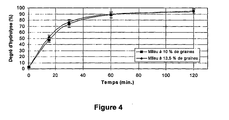
- the ultrasonic probe has been set to its maximum power, ie 82 W with an active period of 100%. Two seed contents were tested: 10 and 13.5%. Beyond this, the ultrasound probe heats up, which presents a risk of deterioration of the equipment. As before, each test was performed three times to ensure reproducibility.
- the kinetics obtained, presented on the figure 4 are superimposable, to experimental errors close.
- the rate of hydrolysis is rapid during the first 30 minutes, then slow down gradually until reaching a plateau after 60 minutes of reaction, for an optimum value of 95% DH.
- lipase does not seem to be affected by this variation in dry matter content. This seems logical because if the proportion of seeds introduced into the medium differs, the enzyme / seed ratio does not vary. This means that neither the glyceride / lipase ratio nor the proportion of proteins relative to the enzyme has changed. Thus, the contribution of potentially inhibitory compounds is counterbalanced by the addition in parallel of an identical proportion of lipase. The only parameter that could have been limiting is the amount of water available for the reaction to take place. Experimental results show that this is not the case.
- a mixture containing 15% of rapeseeds in distilled water is milled for 5 minutes in a "Warring Blendor" type household blender.
- the lipase resulting from Candida rugosa (Lipolyve, Lyven, Cagny, France) is solubilized in water so as to obtain a concentration of 10 mg / ml.
- Ninety grams of the previously obtained seed mill material is supplemented with 10 grams of enzyme solution in a 150 ml jacketed beaker.
- the medium contains 13.5% by weight of rapeseeds and a quantity of lipase corresponding to 333 UL / g of seeds.
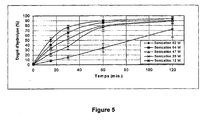
- the mixture is then treated with ultrasound (Vibracell, Bioblock Scientific, Illkirch, France) for 5 minutes at 12, 28, 47, 64 or 82 W (100% of active period) according to the tests.
- the medium is cooled during the sonication by circulation of cold water in the wall of the beaker. After this step, the flow of cold water is immediately replaced by that coming from a bath thermostated at 37 ° C.
- the medium is then allowed to evolve under magnetic stirring (250 rpm) for 120 minutes.
- the reaction is monitored by a series of samples taken at predetermined times. In these, 1.5 ml of medium are transferred to a tube containing 1 ml of hydrochloric acid and 5 ml of chloroform. After vigorous stirring, the organic phase is removed, dried with anhydrous Na 2 SO 4 and then diluted 10-fold before being injected with GPC for analysis. Each test was performed three times to determine the error in the experimental value
- EXAMPLE 7 Optimal conditions for homogenization by sonication - duration of sonication.
- the sonication period was set in turn at 30 sec, 1 min, 2 min, 3 min. and 5 min for an ultrasonic power set at 64 W.
- the evolution of DH as a function of time is used as the answer, each test being repeated three times to ensure reproducibility.
- the kinetics obtained during the hydrolysis of rapeseed lipids in situ with different sonication durations at 64W are represented on the figure 6 .
- the observed rates of hydrolysis are all the more rapid as the duration of the period of passage of the ultrasound medium is long.
- the curves obtained for 3 and 5 minutes of treatment of the medium by the ultrasound are superimposable, with the experimental errors close. According to these results, the duration of sonication of the The middle therefore plays a positive role to a certain extent. For higher processing times, a plateau is reached.
- the positive effect of the sonication duration seems logical in view of the results obtained in the context of the tests on the impact of the ultrasonic power dissipated in the medium.
- the increase in ultrasound passage time favors their action. This results in a more complete disruption of the cell walls, which improves the accessibility of the lipase to its lipid substrate.
- the increase in the duration of sonication favors interactions between the seed oil and the lipase, which explains an increase in reactivity.
- the palliation is justified as for him the result to a maximum of the process of cell lysis for which the sound power introduced into the medium becomes limiting for the continuation of the degradation of the biological structures of the seed. As a result, a maximum of reactivity is achieved for a given ultrasonic power.
- the duration of sonication of the medium is an important parameter, which plays a positive role on reactivity.
- the explanation of these observations is close to that advanced to justify the influence of the ultrasonic power applied to the medium.
- a maximum is observed for a duration of treatment greater than or equal to 3 minutes, beyond which there is no longer any improvement in the interactions between the lipase and its substrate.
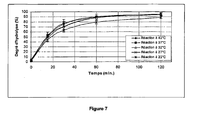
- the ultrasonic power dissipated in the medium is 82 W and the temperature is set at 22, 27, 32, 37 or 42 ° C.
- the different kinetics of DH obtained are compared with each other. Each test is repeated 3 times and a standard deviation is calculated.
- the amount of lipase is a second determining factor for reactivity.
- the determination of this parameter thus makes it possible to determine the influence of the enzyme / seed ratio on the reactivity and on the efficiency of the lipase, in particular with regard to inhibitions of the enzyme by seed compounds.
- the protocol followed is identical to the previous examples, with an ultrasonic power set at 82 W, a temperature of 37 ° C.
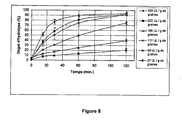
- the amount of lipase is, for its part, variable according to the tests, the various lipase / seed ratios tested being 27.7, 55, 111, 222 and 333 UL / g of seeds. As in previous experiments, each point was done 3 times to determine the experimental error bar.
- the denominator represents total concentration of fatty acid radicals, whether in free form or bound to glycerol. This sum therefore remains constant, whatever the DH. The difference in DH between 0 and 15 minutes is therefore equal to the amount of fatty acids produced during this period, normalized by the amount of total fatty acid radicals.
- the amount of lipase introduced has a positive effect on the kinetics of hydrolysis of the lipids of the seed.
- the calculation of initial velocities allows us to show that this response varies linearly with the amount of enzyme added to the medium, the specific activity remaining relatively stable. It is deduced that despite inhibition caused by competition for binding at the interface, the amount of lipase introduced into the medium is a limiting factor of hydrolysis.
- the media observed are prepared according to the same protocol as during the study of the reactivity presented in the previous example.
- the lipase / seed ratio is set at 333 UL / g of seeds.
- the cell break is for its part ensured by a wet grinding 5 minutes followed by a period of 5 min. son of 82 W.
- the proportion of seed introduced is 13.5% by weight.
- the media thus obtained are allowed to react until complete hydrolysis.
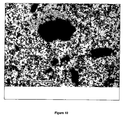
- the fatty acids appear in the form of a granulation present over the entire surface observed.
- the lipid droplets do not seem to disperse but rather aggregate into small clusters. This phenomenon is important for the efficiency of the extraction step because it indicates that the surfactants of all kinds that garnish the fat globules do not create repulsion between them. In case of difficulties for the rupture of the emulsion, only the rigidity of the interface can be questioned.
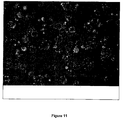
- the photo of the Figure 11 demonstrates that the centrifugation of the medium allows a good separation of lipids and cell debris resulting from the breaking of the seed. Moreover, the trend already observed at lower magnification that the droplets associate to form aggregates is confirmed by this finer shooting.
- This coalescence may result either from the fusion of fat globules during the breakage treatment of native cell structures, or from a natural instability of the formed emulsion.
- the first hypothesis seems the most likely, however, because no visible change in the size of fat globules seems to have occurred during centrifugation.
- the figure 12 is a photograph taken at an intermediate magnification of 400 ⁇ , shows the detail of a group of cells that have undergone the hydrolysis process. In this photograph, it is possible to clearly distinguish fully emptied cells from their contents, as well as cells that still contain some of their constituents.
Landscapes
- Chemical & Material Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Microbiology (AREA)
- Engineering & Computer Science (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Oil, Petroleum & Natural Gas (AREA)
- Wood Science & Technology (AREA)
- Organic Chemistry (AREA)
- Biochemistry (AREA)
- General Chemical & Material Sciences (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
Description
- La présente invention se rapporte au domaine de la préparation d'acides gras à partir des lipides contenus dans les graines de certains végétaux.
- Les acides gras sont des acides carboxyliques ayant divers degrés d'insaturation et une grande variété de poids moléculaires. Les acides gras sont utilisés dans la fabrication d'une grande variété de produits, tels que les savons et les tensioactifs, les lubrifiants, les peintures et les revêtements, ou encore les bougies, ainsi que dans une grande diversité d'autres produits de l'agriculture et de l'industrie, notamment dans le domaine agroalimentaire.
- Classiquement, les acides gras sont produits par hydrolyse chimique d'une huile, par exemple par l'action de la chaleur et de la pression en présence d'eau, afin de rompre les liaisons entre l'acide et l'alcool constitutifs des lipides contenus dans les huiles.
- Bien que les acides gras ont été produits par synthèse chimique, une partie importante de ces derniers est préparée à partir d'huiles naturelles.
- On connaît aussi des procédés de préparation d'acides gras par hydrolyse d'un milieu contenant des lipides sous l'action d'une lipase capable d'hydrolyser les lipides respectivement en acides gras et alcools, principalement le glycérol. L'hydrolyse de l'huile d'olive en utilisant la lipase de Candida rugosa a été décrite par LINFIELD et al. (LINFIELD W M et al., 1984, J. AM. Oil Chem. Soc. vol. 61:1067-1071). Cependant, l'hydrolyse nécessitait un traitement préalable de l'huile substrat de départ avec une terre de blanchiment.
- L'hydrolyse de l'huile de soja par la lipase a été décrite par PARK et al. (PARK Y K et al. 1988, J. Am. Oil Chem. Soc., vol. 61: 252-254). Cependant une lipolyse presque complète nécessitait l'utilisation de deux lipases distinctes.
- Le brevet américain publié sous le n°
US 5,932,458 décrit un procédé d'hydrolyse d'une huile à l'aide d'une lipase immobilisée. Notamment, la lipase peut être obtenue par broyage de graines d'avoine, puis élimination des lipides par extraction avec un solvant Pour effectuer la réaction d'hydrolyse, la lipase immobilisée est ensuite mise en contact avec de l'huile de soja dans un solvant organique, le 2,2,4-triméthylpentane. - RAO et al. (RAO KSVA et al., 1992, Res. Ind., vol.37 :36) décrivent une méthode d'hydrolyse utilisant un broyat de graines de ricin, .dans lequel la lipase endogène de la graine, qui est libérée des sphérosomes intracellulaires par le broyage des graines, est utilisée pour hydrolyser les lipides endogènes de ces graines broyées. De même, JACHMANlAN et al. (JACHMANIAN I et al., 1995, J Agric. Food Chem. vol. 43(11): 2992-2996) ont étudié l'hydrolyse des lipides d'un broyat de graines de colza germées, sous l'action de la lipase endogène.
- Le brevet américain n°
US 3,640,725 décrit un procédé de préparation d'un extrait de protéines à partir de graines de soja. Le procédé de ce document antérieur comprend notamment une étape d'incubation d'une pâte obtenue à partir de graines de soja broyées avec une composition d'enzymes protéolytiques. - Toutefois, ces études d'hydrolyse des lipides par les lipases endogènes impliquent de choisir précisément le stade de développement des graines utilisées, puisque les lipases ne sont produites qu'au moment de la germination.
- De plus, ces études visent exclusivement à montrer que les graines entières sont des sources de lipase. Aucun essai d'extraction des acides gras et des alcools n'est donc décrit.
- Le demandeur s'est attaché à mettre au point un procédé amélioré de préparation d'acides gras, par hydrolyse des lipides contenus dans les graines d'une plante, qui soit simple, rapide, et qui permette l'obtention d'un haut rendement d'hydrolyse. En particulier, le demandeur s'est attaché à mettre au point un procédé amélioré ne nécessitant pas une étape d'extraction de l'huile préalable à la mise en contact de la lipase avec les lipides dont l'hydrolyse, respectivement en acides gras et alcools, est recherchée.
- De manière surprenante, on a montré selon l'invention qu'une hydrolyse quasi-complète des lipides contenus dans des graines de plantes pouvait être obtenue en faisant agir une lipase exogène dans un milieu réactionnel hétérogène solide/liquide dans lequel le substrat lipidique est présent.
- Plus précisément, on a montré selon l'invention, qu'une lipase exogène placée dans un milieu réactionnel substrat hétérogène solide/liquide, lequel milieu réactionnel est soumis à un traitement d'homogénéisation drastique à haute pression ou par ultrasons, conserve son activité catalytique d'hydrolyse des lipides contenus dans la solution substrat ainsi traitée.
- On a également montré selon l'invention qu'une lipase exogène était capable d'effectuer une hydrolyse complète ou quasi-complète des lipides présents, dans ce milieu réactionnel hétérogène solide/liquide, sous la forme d'une émulsion constituée de gouttelettes d'huile dispersées dans un milieu aqueux, et que les acides gras résultant de l'hydrolyse des lipides contenus dans ladite émulsion pouvaient être facilement récupérés, par exemple par simple extraction.
- Il a enfin été montré selon l'invention qu'un traitement de graines de plantes par broyage et homogénéisation permettait de rendre accessible la plus grande partie des lipides initialement contenus dans les graines à l'action d'une lipase exogène.
- La présente invention a pour objet un procédé de préparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante, caractérisé en ce qu'il comprend les étapes suivantes :
- a) broyage des graines en milieu aqueux jusqu'à l'obtention d'une suspension de particules solides d'un diamètre inférieur à 500 µm ;
- b) ajout d'une lipase exogène dans la suspension obtenue à l'étape a) ;
- c) homogénéisation de la suspension contenant la lipase jusqu'à l'obtention d'un homogénat constitué d'une émulsion des lipides contenus initialement dans les graines, en mélange avec les particules solides des graines ;
- d) hydrolyse des lipides contenus dans l'homogénat obtenu à l'étape c) à une température comprise entre 15°C et 55°C, pendant une durée comprise entre 15 minutes et 5 heures ;
- e) récupération des acides gras résultant de l'hydrolyse des lipides réalisée à l'étape d).
- Selon le procédé ci-dessus, l'étape a) de broyage est réalisée à l'aide d'un broyeur à couteauxde type « Waring Blendor » dans un milieu aqueux. En général, l'obtention de particules solides d'un diamètre moyen inférieur à 500 µm peut être obtenu par une durée de broyage des graines dans le milieu aqueux de quelques minutes, de préférence entre 1 et 10 minutes et de manière tout à fait préférée entre 2 et 7 minutes, par exemple pendant une durée de 5 minutes.
- Le milieu aqueux de broyage est préférentiellement de l'eau mais peut être également toute solution tampon, telle que par exemple les deux solutions tampons ci-dessous :
- Tampon phosphate 0,1M obtenu à partir du dihydrogénophosphate de sodium dihydrate NaH2 PO4, 2H2O et équilibré à pH 7,0 avec l'hydroxyde de sodium Na OH.
- Tampon tris (hydroxyméthyl) aminométhane ajusté à pH 7 avec de l'acide chlorhydrique.
- Autres milieux d'hydrolyse : réactivité en milieu NaCl 0,1M.
- Toutefois, le recours à une solution tampon n'est pas privilégiée car une solution tampon est susceptible d'introduire des composés contaminants indésirables qu'il est difficile ou long d'éliminer, dans la suite du procédé.
- De préférence, lors de l'étape a) de broyage, les graines sont ajoutées au milieu aqueux à raison d'une proportion inférieure à 20%, de préférence inférieure à 15%, en poids total du milieu aqueux contenant les graines.
- Pour une proportion de graines supérieure à 20% en poids total du milieu aqueux, l'étape a) de broyage est difficile, voire impossible à réaliser, du fait d'une viscosité trop grande du milieu aqueux. De plus, pour une proportion des graines supérieure à 20% en poids total du milieu aqueux contenant les graines, l'étape e) de récupération des acides gras est difficile à réaliser de manière optimale, du fait d'une proportion de phase solide trop élevée.
- De préférence, la proportion en poids des graines, par rapport au poids total du milieu aqueux contenant les graines, est inférieure à 15%.
- En revanche, si les limites supérieures en proportion de poids des graines indiquées ci-dessus sont respectées, une cinétique optimale de la réaction d'hydrolyse et un degré d'hydrolyse d'au moins 95% des lipides sont obtenus quelle que soit la proportion en poids de graines utilisées, pour un rapport poids de lipase/poids de graines donné. Ainsi, on a montré que la cinétique d'hydrolyse et le degré d'hydrolyse des lipides contenus dans les graines était identique avec un milieu aqueux de broyage contenant respectivement 10% et 13,5 % en poids de graines, par rapport au poids total du milieu aqueux contenant les graines, pour un rapport poids de lipase/poids de graines identique.
- La lipase exogène, ajoutée à l'étape b) dans la suspension hétérogène liquide/solide obtenue à la fin de l'étape a), peut être de toute nature. Elle peut être une lipase obtenue à partir de microorganismes des genres Rhizopus, Mucor, Alcaligenes, Candida, Aspergillus, Pseudomonas, Humicola, Thermomyces ou encore Penicillium ou à partir des lipases des végétaux.
- A titre illustratif, on peut utiliser la lipase obtenue à partir de Candida rugosa, comme décrit dans les exemples.
- De préférence, la lipase exogène est ajoutée à raison de 100 à 500 unités, de préférence de 150 à 400 unités de lipase, par gramme du poids des graines traitées à l'étape a).
- Une unité de lipase correspond à la quantité de lipase requise pour libérer 1 µmole d'acide gras à partir de glycéride, par minute, en conditions optimales d'activité catalytique de l'enzyme.
- On a en effet montré selon l'invention qu'une bonne cinétique d'hydrolyse était obtenue avec une quantité de lipase d'environ 100 unités par gramme de graines de départ et que le degré d'hydrolyse obtenu avec ce rapport lipase/graines atteignait environ 75% d'hydrolyse des lipides contenus initialement dans les graines.
- Pour des rapports lipase/graines supérieurs, la cinétique d'hydrolyse est encore améliorée et l'hydrolyse des lipides est presque complète. Ainsi, un degré d'hydrolyse des lipides supérieur à 90% est obtenu avec un rapport lipase/graines de 166 unités de lipase par gramme de poids de graines traitées à l'étape a).
- Pour des rapports encore supérieurs lipase/graines, bien que la cinétique d'hydrolyse soit accrue, le degré d'hydrolyse n'est pas significativement amélioré. Ainsi, pour un rapport lipase/graines de 333 unités de lipase par gramme du poids de graines traitées à l'étape a), un degré d'hydrolyse des lipides d'environ 95% est obtenu.
- A l'étape c), l'homogénéisation de la suspension liquide/solide contenant initialement des particules grossières de graines inférieures à 500 µm est réalisée jusqu'à l'obtention d'un homogénat constitué d'une émulsion des lipides contenus initialement dans les graines, en mélange avec les particules solides des graines.
- L'étape c) d'homogénéisation de la suspension hétérogène liquide/solide et contenant la lipase exogène peut être réalisée par tout moyen connu en soi.
- De préférence, l'étape c) d'homogénéisation est réalisée par homogénéisation sous pression ou encore par homogénéisation par sonication.
- Pour réaliser l'étape c) par homogénéisation sous pression, on peut utiliser un homogénéisateur à haute pression tel que l'homogénéisateur du type Lab 1000 commercialisé par la Société APV (Evreux, France), selon les recommandations du fabricant.
- De préférence, l'homogénéisation sous pression est réalisée à une pression comprise entre 25 et 1000 bars, de préférence entre 100 et 500 bars, par exemple à 150 bars.
- Le saut de pression provoqué au milieu produit une onde de choc contribuant à la désintégration des cellules de la graine et disperse les lipides contenus dans la graine.
- De manière tout à fait préférée, l'étape c) d'homogénéisation sera réalisée par deux cycles successifs d'homogénéisation sous pression.
- De manière surprenante, l'homogénéisation sous pression n'affecte pas l'activité spécifique de la lipase exogène.
- De plus, il a été observé que la réalisation de plusieurs cycles d'homogénéisation sous pression accroît le rendement final d'extraction des acides gras, même si un tel traitement inhibe faiblement l'activité de la lipase exogène.
- Ainsi, bien que l'étape c) d'homogénéisation peut être effectuée par 1 à 4 cycles de passages dans un homogénéisateur à haute pression, des résultats optimaux sont obtenus avec deux cycles d'homogénéisation à haute pression. Dans ce cas, le rendement d'extraction des acides gras à la fin du procédé est accru sans affecter drastiquement l'activité de la lipase exogène.
- Selon une alternative avantageuse, l'étape c) d'homogénéisation de la suspension contenant la lipase exogène peut être réalisée par sonication de ladite suspension jusqu'à l'obtention d'un homogénat constitué d'une émulsion des lipides contenus initialement dans les graines, en mélange avec les particules solides des graines.
- Pour réaliser l'étape c) d'homogénéisation par sonication, la suspension particules solides à laquelle a été ajoutée la lipase exogène est traitée par des ultrasons à une puissance supérieure à 20 Watts.
- La fréquence des ultrasons ne semble pas un paramètre essentiel du traitement.
- Pour réaliser l'étape d'homogénéisation par sonication, on peut utiliser notamment le générateur d'ultrasons de type Vibracell commercialisé par la Société Bioblock Scientific (Illkirsch, France).
- On a montré selon l'invention qu'une bonne cinétique d'hydrolyse des lipides ainsi qu'un haut degré d'hydrolyse étaient obtenus avec une puissance d'ultrasons supérieure à 20 Watts. Ainsi, pour une puissance d'ultrasons de 28 Watts, le degré d'hydrolyse après 120 minutes de réaction enzymatique atteint presque 90%. Pour des puissances d'ultrasons supérieures, la cinétique d'hydrolyse des lipides est encore accrue et le degré d'hydrolyse augmente encore. Par exemple, un degré d'hydrolyse des lipides d'environ 95% est obtenu avec une puissance d'ultrasons de 82 Watts.
- De préférence, on utilise une puissance d'ultrasons comprise entre 20 et 200 Watts, et de manière tout à fait préférée entre 20 et 100 Watts.
- La durée de l'étape d'homogénéisation par sonication est avantageusement comprise entre 10 secondes et 10 minutes, de préférence entre 30 secondes et 5 minutes. Pour une durée de sonication de 30 secondes à la puissance de 64 Watts, on a observé une cinétique moyenne d'hydrolyse des lipides conduisant à un degré d'hydrolyse après 120 minutes de réaction supérieur à 85%. Dans les mêmes conditions, une durée de sonication de 1 minute améliore considérablement la cinétique réactionnelle et un degré d'hydrolyse supérieur à 90% est atteint après 120 minutes de réaction.
- Des durées supérieures de sonication accroissent encore la cinétique réactionnelle sans augmenter significativement le degré d'hydrolyse final.
- Quelle que soit la nature de l'étape c) d'homogénéisation, par homogénéisation à haute pression ou par homogénéisation par sonication, les degrés d'hydrolyse des lipides obtenus à la fin du procédé sont comparables. Ils sont en général supérieurs à 95%, dans les conditions optimales indiquées ci-dessus.
- De même, les résultats obtenus dans les exemples montrent que le rendement final d'extraction des acides gras résultant de l'hydrolyse des lipides est sensiblement le même, que l'étape c) d'homogénéisation ait été réalisée par homogénéisation sous pression ou encore par homogénéisation par sonication.
- On remarque toutefois qu'une homogénéisation sous pression produit des résultats légèrement supérieurs à ceux obtenus avec une homogénéisation par sonication. Le rendement total de l'extraction des acides gras à la fin du procédé est, dans le cas d'une homogénéisation sous pression, supérieur de 6,5% au rendement observé lorsque l'étape c) d'homogénéisation a été réalisée par sonication.
- L'observation au microscope de l'homogénat obtenu à l'étape c) montre que cet homogénat est formé de gouttelettes lipidiques qui s'agrègent en petits amas formant une émulsion, l'homogénat contenant en outre de nombreux débris solides des graines, notamment des débris de coque des graines ainsi que des débris cellulaires. La taille des gouttes grasses est en moyenne comprise entre 5 et 15 µm et leur surface apparaît fine et lisse, ce qui suggère que la stabilisation de l'interface huile/eau des gouttelettes ne fait pas intervenir de particules solides.
- Ainsi, l'homogénat contient les lipides contenus initialement dans les graines sous la forme d'une émulsion liquide/liquide avec l'eau présente dans le milieu aqueux que constitue ledit homogénat.
- L'étape d) d'hydrolyse des lipides contenus dans l'homogénat obtenu à l'étape c) est réalisée par l'incubation de l'homogénat à une température comprise entre 15°C et 55°C, pendant une durée comprise entre 15 minutes et 5 heures.
- Durant cette étape, la lipase exogène catalyse la réaction d'hydrolyse des lipides, notamment des triglycérides, contenus sous la forme d'une émulsion liquide/liquide dans l'homogénat, respectivement en les différents acides gras constitutifs desdits lipides, d'une part, et des divers alcools, notamment le glycérol, avec lesquels lesdits acides gras étaient estérifiés dans les sphérosomes des graines.
- Pour une température de 22°C, on observe une bonne cinétique d'hydrolyse des lipides associée à un degré d'hydrolyse supérieur à 85%. Lorsque l'on augmente la température de réaction, la cinétique d'hydrolyse des lipides s'accroît, ainsi que le degré d'hydrolyse final. Toutefois, un degré d'hydrolyse d'environ 95% est déjà obtenu après 120 minutes de réaction à la température de 27°C. A des températures supérieures, la cinétique réactionnelle augmente, alors que le degré d'hydrolyse n'est pas significativement amélioré.
- Le procédé de préparation d'acides gras par hydrolyse in situ de l'invention peut donc être réalisé à température ambiante sans nécessiter un chauffage du milieu réactionnel constitué de l'homogénat obtenu à l'étape c), ce qui rend ce procédé simple de mise en oeuvre et en outre peu onéreux.
- En outre, la possibilité de réaliser l'étape d) d'hydrolyse à basse température, par exemple entre 20°C et 30°C permet d'éviter, ou à tout le moins de réduire, l'hydrolyse simultanée d'autres composés indésirables tels que les glucosinolates, dont les produits d'hydrolyse soufrés engendrent des troubles thyroïdiens chez l'homme et l'animal. En effet, à une température égale ou inférieure à 30°C, la myrosinase, qui est l'enzyme responsable de l'hydrolyse des glucosinolates , est peu active, l'activité catalytique optimale de cette enzyme se situant entre 40°C et 70°C.
- De plus, le fait qu'une bonne cinétique d'hydrolyse des lipides associée à un haut degré d'hydrolyse final soient atteints pour de larges plages de températures de l'étape d) d'hydrolyse, rend le procédé de l'invention particulièrement simple à réaliser, puisqu'aucune régulation précise de la température de réaction n'est requise.
- Avantageusement, la durée de l'étape d) d'hydrolyse des lipides peut être adaptée en fonction de la température de réaction choisie. Toutefois, elle peut être réalisée de manière optimale pour une durée comprise entre 60 et 120 minutes à une température de réaction égale ou supérieure à 27°C.
- Le procédé de préparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante ci-dessus est très reproductible. On a montré que la différence de degré d'hydrolyse entre 0 et 15 minutes de réaction varie de manière linéaire avec le rapport pondéral lipase exogène/poids des graines.
- Sans vouloir être lié par une quelconque théorie, le demandeur pense que le haut niveau d'hydrolyse des lipides obtenus grâce au procédé de l'invention est due notamment à la nature spécifique de l'homogénat obtenu à l'issue de l'étape c) dudit procédé. L'étape c) d'homogénéisation permet en effet une rupture physique de la structure macroscopique des graines et une libération dans le milieu aqueux des lipides contenus initialement dans les sphérosomes, qui sont des vésicules intracellulaires entourées d'une membrane. Le demandeur pense qu'au cours de l'étape c) d'homogénéisation, la lipase se localise sur toute la surface de l'interface huile/eau des gouttelettes lipidiques générées ce qui permet une hydrolyse rapide et aussi complète que possible desdits lipides substrats qui sont facilement accessibles à l'enzyme.
- L'étape e) de récupération des acides gras résultant de l'hydrolyse des lipides réalisés à l'étape d) peut être effectuée par toute méthode d'extraction des lipides connus de l'homme du métier.
- De préférence, l'étape e) de récupération des acides gras comprend les étapes suivantes :
- e1) séparation des acides gras des autres constituants de l'homogénat obtenu à l'étape d), sous la forme d'une émulsion ;
- e2) extraction des acides gras à partir de l'émulsion, avec un solvant.
- Selon un mode de réalisation préféré de l'étape e1), les acides gras sont séparés des autres constituants de l'homogénat obtenu à l'étape d) par obtention d'un milieu liquide à trois phases, respectivement une phase solide, une phase aqueuse et une phase d'émulsion lipidique, par centrifugation de l'homogénat, puis récupération de la phase d'émulsion lipidique. L'obtention du milieu liquide triphasique est préférentiellement réalisée par centrifugation du milieu hétérogène liquide/solide réactionnel à la fin de l'étape d) d'hydrolyse. Le cas échéant, plusieurs centrifugations successives peuvent être réalisées afin d'améliorer le rendement du procédé.
- A l'issue de la ou des centrifugations, on obtient un milieu triphasique comprenant respectivement (i) un culot solide comprenant essentiellement les débris solides des graines, coques ou débris cellulaires, (ii) une phase aqueuse et (iii) une phase huileuse sous la forme d'une émulsion.
- La phase huileuse sous la forme d'une émulsion constitue la phase enrichie en acides gras résultant de l'hydrolyse des lipides initialement contenus dans les graines. Cette phase huileuse représente environ 7 à 10% en poids du poids total du milieu réactionnel obtenu à la fin de l'étape d) d'hydrolyse.
- La phase d'émulsion huileuse est séparée des deux autres phases respectivement aqueuses et solides, par exemple par simple prélèvement à la surface du milieu triphasique obtenu après centrifugation. Lorsque plusieurs centrifugations successives sont réalisées, les fractions d'émulsions huileuses sont réunies en vue de procéder à l'étape e2) d'extraction des acides gras avec un solvant.
- De préférence, l'extraction des acides gras est réalisée avec un solvant choisi parmi l'eau, un alcool, un ester, un carbonate organique ou une cétone.
- On a préférentiellement recours à l'eau pour l'extraction des acides gras sous forme d'une émulsion.
- On a préférentiellement recours à l'éthanol pour l'extraction des acides gras et l'obtention de concentrats, ainsi que pour la transformation ultérieure des acides gras en esters éthyléniques, pour des applications diverses, notamment dans des solvants, des lubrifiants, des cosmétiques, des conservateurs, etc...
- On a préférentiellement recours à un ester ou à un carbonate organique pour la transformation ultérieure des acides gras, in situ ou ex situ.
- Le solvant précipite les protéines et les phospholipides contenus dans l'émulsion et solubilise les acides gras. La fraction de composés précipités et la fraction d'acides gras solubilisés peuvent être aisément séparées, par exemple par centrifugation.
- Afin d'améliorer encore le rendement final du procédé, on procédera avantageusement à plusieurs cycles d'extraction avec le solvant, les fractions d'intérêt contenant les acides gras obtenus à la fin de chaque cycle d'extraction étant ensuite réunies.
- De préférence, le solvant utilisé est l'éthanol, qui peut être par exemple ajouté à l'émulsion contenant les acides gras à raison de 1,5 à 2 volumes d'éthanol par volume d'émulsion.
- L'étape e2) d'extraction des acides gras à partir de l'émulsion à l'aide d'un solvant est avantageusement suivie d'une étape e3) de séchage de la solution d'extraction contenant les acides gras.
- Avantageusement, l'étape de séchage peut être réalisée par simple évaporation, à pression atmosphérique ou encore sous vide jusqu'à atteindre un séchage complet des acides gras.
- Selon une autre alternative, l'étape e3) de séchage peut être une étape de séchage modéré dans lequel seul le solvant est éliminé, le milieu aqueux résiduel étant conservé.
- Le cas échéant, lorsque l'étape e3) de séchage des acides gras est réalisée de la manière modérée indiquée ci-dessus, le mélange acides gras/eau peut être séparé par centrifugation. Selon ce mode de mise en oeuvre spécifique de l'étape e3) du procédé, la qualité des acides gras obtenus à la fin du procédé est la meilleure, car l'eau retient d'éventuelles impuretés tels que des peptides solubles dans l'alcool ou encore des traces de phospholipides.
- La présente invention est en outre illustrée, sans pour autant être limitée, par les figures et les exemples suivants.
-
- La
Figure 1 illustre la cinétique d'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa avec une étape d'homogéinisation réalisée par sonication. - La
Figure 2 illustre les cinétiques d'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa : comparaison des outils de cassage cellulaire, sonication ou homogénéisation haute pression. - La
Figure 3 illustre le pourcentage cumulé des lipides totaux extraits par centrifugation des milieux issus de l'hydrolyse enzymatique in situ de l'huile de colza, après sonication ou homogénéisation - La
Figure 4 illustre les cinétiques comparatives d'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa (1) :effet de la teneur en matière sèche dans le milieu - La
Figure 5 illustre les cinétiques comparatives d'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa (2) : effet de la puissance ultrasonore dissipée dans le milieu. - La
Figure 6 illustre les cinétiques comparatives d'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa (3) : effet de la durée du traitement ultrasonore. - La
Figure 7 illustre les cinétiques comparatives d'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa (4) : effet de la température sur la vitesse de réaction. - La
Figure 8 illustre les cinétiques comparatives d'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa (5) : effet de la quantité de lipase introduite dans le milieu. - La
Figure 9 illustre l'hydrolyse enzymatique in situ des lipides endogènes de la graine de colza par la lipase issue de Candida rugosa : effet de la quantité de lipase introduite dans le milieu sur son activité spécifique et la vitesse initiale. - La
Figure 10 est un cliché photographique de microscopie photonique (grossissement x100) de l'homogénat à la fin de l'étape d'hydrolyse des lipides. - La
Figure 11 est un cliché photographique de microscopie photonique (grossissement x1000) de l'homogénat à la fin de l'étape d'hydrolyse des lipides - La
Figure 12 est un cliché photographique de microscopie photonique (grossissement x400) de l'homogénat à la fin de l'étape d'hydrolyse des lipides - Les graines de colza sont additionnées d'eau de manière à obtenir les proportions 1 : 8 en masses, respectivement. Ce mélange est alors versé dans un mixeur ménager de type « Warring blendor ». Le broyage est alors effectué pendant 5 minutes en ayant soin de ramener dans le fond du bol les particules qui adhèrent aux parois. Parallèlement, la lipase issue de Candida rugosa (Lipolyve, Lyven, Cagny, France) est solubilisée dans l'eau de manière à obtenir une concentration de 10 mg /ml. Quatre-vingt-dix grammes du broyat de graine précédemment obtenu sont additionnées de 10 grammes de solution enzymatique dans un bécher à double enveloppe de 150 ml. A ce stade, le milieu contient 10 % en masse de graines de colza et une quantité de lipase correspondant à 300 UL / g de graines.
- Le mélange obtenu après broyage à sec ou en présence d'eau est ensuite traité par les ultrasons (Vibracell, Bioblock Scientific, Illkirch, France) 5 minutes à 59 W (70% de période active). Le milieu est refroidi pendant la sonication par circulation d'eau froide dans la paroi du bécher. Après cette étape, le courant d'eau froide est immédiatement remplacé par celui provenant d'un bain thermostaté à 37°C. On laisse alors le milieu évoluer sous agitation magnétique (250 rpm) pendant 120 minutes. Le suivi de la réaction est assuré par une série de prélèvement réalisés à des temps prédéterminés. Lors de ceux-ci, 1,5 ml dé milieu sont transférés dans un tube contenant 1 ml d'acide chlorhydrique et 5 ml de chloroforme. Après agitation vigoureuse, la phase organique est prélevée, séchée avec Na2SO4 anhydre, puis diluée 10 fois avant d'être injectée en CPG pour analyse dans une colonne capillaire BPX5 (SGE) dimensions 12m x 0,32 mm ; épaisseur du film : 0,25 µm. Température du four: Gradiant de 80°C pendant 1 min (10°C/min) 16°C jusqu'à 140°C ; 7°C/min jusqu'à 300°C ; 15°C/min jusqu'à 360°C maintenu pendant 10 min. Température du détectant 365°C.
- Les cinétiques d'hydrolyse obtenues sont présentées sur la
figure 1 . - Les résultats montrent qu'une bonne cinétique d'hydrolyse des lipides est obtenue, puisque la réaction d'hydrolyse atteint un plateau après seulement 120 minutes de réaction. Le degré d'hydrolyse atteint 90%.
- La présence d'amas cellulaires ne libérant pas la totalité des lipides inclus dans les cellules qu'ils contiennent nous a amené à chercher un autre outil de remplacement assurant une rupture plus complète des cellules de la graine. Déjà utilisé dans des domaines variés en agro-alimentaire, l'homogénéiseur haute pression nous est paru être une alternative envisageable. Wäsche et al. (1993, Wäsche A., Luck T. Holley W, 1993. « Influence of technological parameters and protein properties on the aqueous extraction and demulsification of oil from rapeseed » In Food proteins : Structure and functionality developed from the 4th Symposium on food, Schwenke K.D. (Ed.) Weinheim 198-200), ont par ailleurs décrit ce procédé comme efficace pour l'extraction aqueuse d'huile de colza. Cet outil a été choisi pour sa compatibilité avec le travail à l'échelle industrielle en plus de sa robustesse. Son principe de fonctionnement consiste à forcer le liquide à émulsionner au moyen d'une pompe à débit constant, au travers de l'espace de quelques µm laissé libre par une vanne de contre-pression. La pression en amont de cette dernière devient alors très forte, et la décompression brutale en aval de cette vanne entraîne la rupture des macrostructures telles que les cellules. La description détaillée du mode de fonctionnement de ce type d'appareil a été par ailleurs décrite en détail par Lecluse W.J. (1979, Homogénéisations à haute pression, préparation d'émulsions et de dispersions. Information Chimie 191, 1-8). Ce procédé a pour avantage d'être continu et d'obliger le traitement homogène de tout le milieu, contrairement à la sonication pour laquelle les particules ne passent dans la zone active que périodiquement.
- La lipase est ajoutée au milieu après broyage 5 minutes des graines en présence d'eau. L'étape de sonication est quant à elle remplacée par deux cycles d'homogénéisation par un homogénéisateur Lab 1000 (APV, Evreux, France) muni de deux étages d'homogénéisation. La pression du premier étage d'homogénéisation est réglée à 150 bars, celle du second étage étant fixée à 20 bars, en accord avec les résultats publiés par Wäsche et al.(1993) et avec les recommandations du fournisseur. La teneur en graine du milieu est de 13,5% en masses et le rapport lipase / graines est fixé à 333 UL /g de graines, afin de pouvoir comparer les cinétiques mesurées avec celles déjà obtenues auparavant avec l'utilisation des ultrasons. Comme lors des précédents essais, le chronomètre est déclenché à l'addition de la lipase, soit juste avant le début du passage du milieu dans l'homogénéisateur.
- La comparaison des cinétiques obtenues avec sonication ou homogénéisation, tous les autres paramètres restant par ailleurs identiques, peut être effectuée au moyen de leur représentation graphique présentée sur la
figure 2 . - Les deux cinétiques obtenues ont un profil similaire, mais ne sont cependant pas superposables. En effet, la courbe obtenue suite aux essais faisant intervenir l'homogénéisation montre une hydrolyse moins rapide que lors de l'utilisation des ultrasons. Cependant, il est à noter que le maximum de degré d'hydrolyse (DH) obtenu après deux heures de réaction est similaire dans les deux cas.
- L'obtention d'un DH de l'ordre de 95% en 2 heures montre clairement que l'homogénéisation est capable de générer des conditions adéquates pour l'hydrolyse enzymatique in situ des lipides du colza. Il aurait été possible que la violence du traitement subi par le milieu dégrade la lipase, la rendant inactive. Par ailleurs, les essais de ce nouveau matériel ont été réalisés sans aucune optimisation. La vitesse d'hydrolyse mesurée ne représente donc pas a priori un optimum de réactivité, et la gamme de pressions d'homogénéisation possibles pour l'appareil utilisé est assez étendue. Ainsi, il est possible de faire varier la pression d'homogénéisation, mais aussi sur le nombre de passages effectués ou la pression du second étage d'homogénéisation.
- Les premiers résultats cinétiques obtenus lors de l'hydrolyse enzymatique des lipides du colza assistée par l'homogénéisation montrent que celle-ci est possible dans ces conditions de procédé. Même si sa vitesse initiale est inférieure à celle obtenue lorsque la réaction est réalisée après sonication, le DH final reste identique.
-
- AG : acides gras
- MG : monoglycérides
- DG : diglycérides
- TG : triglycérides
- UL : Unité Lipase, correspondant à la quantité de lipase nécessaire pour libérer 1 µmol. d'acide gras par minute, à partir de glycérides en conditions optimales de fonctionnement.
- Inhibition : perte réversible ou irréversible d'une partie de l'activité d'une enzyme suite à un phénomène physique ou du fait d'une interaction avec une ou plusieurs molécules
- US : ultrasons
- CPG : chromatographie en phase gazeuse
- DH : degré d'hydrolyse, défini comme étant le pourcentage de liaisons ester rompues lors de l'hydrolyse de l'huile en acides gras.
- AS : Activité spécifique, définie comme la vitesse de formation des acides gras rapportée à la quantité de préparation enzymatique introduite.
- Un litre de milieu à 15 % en masse est préparé par passage de 5 minutes au mixer de 150g de graines de colza dans 850mL d'H2O. Après passage au mixer, la quantité de milieu récupérée est pesée afin d'estimer la quantité de graines (15 % de la masse récupérée). L'hydrolyse est réalisée avec l'enzyme « LIPOLYVE CC » dont la concentration est 30 unités/mg.
- La solution d'enzyme est préparée dans de l'eau afin d'obtenir après mélange avec le milieu une concentration d'enzyme de l'ordre de 300 unités par gramme de graines et une concentration de graines dans le milieu de l'ordre de 13.5 % en masse.
- La solution d'enzyme est ajoutée au milieu et le tout est passé à l'homogénéisateur 2 cycles à 350 bars. L'homogénat (milieu passé à l'homogénéisateur) ainsi récupéré est placé dans un réacteur à 37°C avec agitation à 250 rpm durant deux heures. L'hydrolysat (homogénat après 2 heures d'hydrolyse à 37°C) est finalement conservé à 4°C.
- L'émulsion est préparée à partir de l'hydrolysat par centrifugation. Après agitation, l'hydrolysat est centrifugé 5 minutes à vitesse maximale. Lors de la dernière préparation d'émulsion, l'hydrolysat a été centrifugé 5 minutes à 7600 G. Lors de la centrifugation, les différentes phases sont séparées et il est possible de récupérer l'émulsion par filtration sur une maille fine. Le culot est ensuite remis en suspension dans la phase aqueuse avant d'être centrifugé une deuxième fois dans les mêmes conditions. L'émulsion formée est ainsi récupérée deux autres fois.
- Après trois centrifugations, seule l'émulsion est conservée et stockée à 4°C. De cette manière, il est possible de récupérer 75g d'émulsion à partir de 1000g d'hydrolysat.
- Les calculs de densité ont été réalisés par pesée de volumes précis (pesée de 5mL dans une fiole jaugée). Le résultat obtenu est une moyenne de trois mesures réalisées sur des émulsions indépendantes.

- La détermination de la matière sèche permet de calculer la quantité d'eau contenue dans l'émulsion. La quantité de matière sèche est calculée par pesée d'un certain volume d'émulsion (environ 4mL) avant et après passage de 6 heures dans une étuve à 103°C. Pour éviter des pertes d'émulsion par projections, le volume d'émulsion pesé est mélangé à du sable avant d'être placé à l'étuve. Toujours pour éviter les pertes, les pesées sont effectuées avec la coupelle en aluminium contenant l'émulsion, avec le sable et avec la spatule ayant servi à mélanger le sable et l'émulsion.
- La quantité restante après 6 heures à 103°C représente la matière sèche. La différence de poids nous renseigne sur la quantité d'eau contenue dans l'émulsion.
- Ce test à été effectué sur trois émulsions indépendantes.

- On attend par l'huile la quantité d'acides gras issus de l'hydrolyse des triglycérides des lipides des graines broyées.
- La teneur en huile de notre émulsion est déterminée selon une "méthode simplifiée par extraction à l'hexane" (Norme V 03-908). Pour des raisons de sécurité, il a été utilisé du cyclohexane et non de l'hexane.
- Cette teneur est déterminée sur la matière sèche nous ayant permis de calculer la quantité d'eau contenue dans l'émulsion. Pour éviter de fausser les résultats, la coupelle en aluminium contenant la matière sèche ainsi que la spatule ont été placées dans la cartouche du soxhlet.
- Après 6 heures d'extraction à chaud, les soxhlets sont démontés et le cyclohexane évaporé sous vide.

m0 : tare du ballon en grammes
m1 : masse ballon après évaporation du cyclohexane en grammes
messai : masse d'émulsion, en grammes, utilisée pour obtenir la matière sèche
- Le dosage des protéines contenues dans l'émulsion se fait indirectement par dosage de l'azote selon la méthode Kjeldahl: minéralisation et distillation à la vapeur.
- Le protocole suivi pour le dosage des protéines sur l'émulsion dérive de la note d'application fournie avec le système de minéralisation « TECATOR 2020 Digestor » :
- prise d'essai d'environ 300mg (pesée au mg près) placée dans tube de minéralisation
- ajout de deux « Kjeltabs CK » (Thompson & Capper LTD, Ref. AA17)
- ajout de 12mL d'H2SO4 95% puis légère agitation
- fixation de la tête d'aspiration sur les tubes, aspiration maximum
- tubes introduits dans bloc de minéralisation « TECATOR 2020 Digestor » à 420°C
- au bout de 5 minutes, réglage de l'aspiration pour conserver les vapeurs acides à l'intérieur de la tête d'aspiration en ayant une position correcte de l'anneau de condensation
- minéralisation poursuivie pendant une heure pour obtenir une solution limpide de couleur bleu/vert
- après 20 minutes de refroidissement, la distillation est réalisée avec l'appareil Kjeltec 1026
- introduction dans le distillateur d'une fiole conique contenant 25mL de solution d'indicateur (acide borique 4 %, vert de bromocrésol 1x10⁻³%, rouge de méthyle 7x10⁻⁴%)
- distillation sur l'appareil Kjeltec 1026 avec les réglages suivants : Alkali 2 (3 volumes sont parfois nécessaires), Delay 2 et Steam 36
- titration du distillat avec une solution d'acide chlorhydrique 0.0136 N
- Deux dosages de l'azote ont été réalisés sur chacune des trois émulsions indépendantes.

V : volume HCl utilisé pour la titration en mL
m : masse d'échantillon d'émulsion en milligrammes
F : facteur de conversion de l'azote en protéines, dans notre cas 6.25
- Dosage colorimétrique du phosphore contenu dans l'émulsion selon la Norme NF-T 60-227 « Méthode Vanadomolybdique » :
- prise d'essai d'environ 1.2g d'émulsion placée dans un creuset
- ajout de 0.1g d'oxyde de magnésium préalablement calciné
- passage de 2 heures au four à 900°C pour obtenir des cendres blanches
- les cendres sont ensuite dissoutes dans 5mL d'HNO3 6N
- préparation des échantillons de la courbe étalon :
- Préparation d'une solution de phosphore à 1 mg/mL dans de l'HNO3 6N (463mg Na2HPO4 dans 100mL d'HNO3 6N). Les différentes concentrations de la gamme sont préparées directement dans les cuves du spectrophotomètre.
- de la même manière les échantillons sont préparés directement dans les cuves avec 400µL de cendres dissoutes dans l'acide, 800µL de Vanadate 0.25% et 800µL de Molybdate 5%
- après 20 minutes (formation du complexe vanadomolybdique), l'absorbance de la gamme étalon et des échantillons est mesurée à 460nm
- avec la courbe étalon, on obtient pour chaque échantillon une concentration en phosphore dans les cendres dissoutes
- la teneur en phosphore de l'émulsion est finalement calculée avec la masse d'émulsion connue
- Le dosage du phosphore a été réalisé sur trois émulsions indépendantes.

[PO4 2-] : concentration en phosphore des cendres dissoutes en mg/mL
m : masse de la prise d'essai en grammes
- Il est aussi possible avec ce dosage d'estimer le pourcentage en masse des phospholipides en multipliant la teneur en phosphore par un facteur 26. Nous obtenons donc ainsi :

- Nous pouvons maintenant faire une synthèse des composants de l'émulsion avec leurs proportions respectives.
L'émulsion est composée de : ... 32,5 % d'H2O +/- 0,6% 58,3 % d'huile +/- 1,3% 7,24 % de protéines +/- 0,47% 3,8 % de phospholipides +/. 0,1 % - Les milieux utilisés pour réaliser ces essais sont obtenus par homogénéisation sous pression ou par homogénéisation par sonication, comme indiqué dans les Exemples 1 et 2
L'homogénéisation par sonication a été réalisée par sonication continue à la puissance de 82 W. - Quarante grammes de milieu hydrolysé sont centrifugés 5 min à 2500 g. La phase aqueuse et l'émulsion sont transférés dans une ampoule à décanter où elles sont mélangées avec 30 ml de méthanol puis 30 ml de chloroforme.
- Cette mixture est centrifugée 5 minutes, puis la phase chloroformique est prélevée, tandis que le reste est extrait une seconde fois par 30 ml de chloroforme. La masse de matière grasse ainsi extraite est pesée après évaporation sous vide du chloroforme.
- Pour sa part, le culot est pesé avant d'être complété avec de l'eau distillée jusqu'à obtention de la masse initiale de milieu traité. L'ensemble est ensuite homogénéisé par agitation vigoureuse 30 secondes. Cette nouvelle suspension est alors traitée comme le milieu initial par centrifugation puis extraction de la matière grasse des phases supérieures au solvant. Au total, 4 cycles sont effectués de cette manière, le dernier culot obtenu étant lui aussi extrait par le chloroforme et le méthanol après avoir été remis en suspension dans 15 ml d'eau distillée. Un bilan sur les lipides pourra ainsi être réalisé.
- Chaque essai a été réalisé à trois reprises pour déterminer l'erreur sur la valeur expérimentale
- Si l'étude cinétique de la réaction d'hydrolyse in situ des lipides du colza après mise en interaction des glycérides et de la lipase par homogénéisation donne une bonne idée des possibilités de ce type de procédé en terme de réactivité, l'étude de l'extractibilité des acides gras formés est primordiale. En effet, c'est surtout en vue d'améliorer le rendement d'extraction des lipides que l'homogénéisation a été testée en tant qu'outil de cassage cellulaire. Ces essais vont donc permettre de comparer l'extractibilité à l'eau des lipides suivant le type de procédé utilisé.
- Le pourcentage cumulé des lipides totaux extraits après chaque cycle de lavage est présenté sur la
figure 3 . La comparaison des résultats obtenus pour une hydrolyse faisant intervenir la sonication ou l'homogénéisation nous montre une extractibilité des lipides identique lors du premier cycle. Cependant, le pourcentage total des lipides extraits au cours des cycles suivants est nettement plus élevé si le milieu a subi un traitement d'homogénéisation sous pression. En effet, une différence de 6,5% est observée sur le rendement total. - Cette différence montre que l'homogénéisation du milieu à haute pression libère une plus grande quantité d'acides gras sous forme d'émulsion. Ceci suggère que la rupture des parois cellulaires est plus étendue que lors des expériences faisant intervenir la sonication.
- La similitude entre les rendements d'extraction lors du premier cycle de centrifugation semblerait indiquer que les interactions entre les particules de l'émulsion et les débris cellulaires sont à peu près équivalentes dans les deux cas.
- La préparation des milieux d'hydrolyse par broyage suivi d'homogénéisation permet d'améliorer nettement le rendement total d'extraction des acides gras produits lors de la réaction. La différence mesurée après 4 cycles de lavage / centrifugation est de 6,5%. Par contre, l'extractibilité observée après le premier cycle d'extraction aqueuse laisse penser que les interactions entre les gouttelettes d'émulsion et les débris cellulaires du culot sont du même ordre dans le cas de l'utilisation des ultrasons ou de l'homogénéisation sous pression.
- La proportion de graines introduites dans le milieu conditionne directement le taux de remplissage du réacteur en substrat glycéridique. En effet, lors de l'augmentation de la teneur en graines du milieu, celui-ci est logiquement enrichi en glycérides et en protéines, qui représentent respectivement 46,5 et 18 % de la masse fraîche des graines de colza utilisées .En conséquence, on a fait varier la quantité de graines dans le milieu dans la limite des possibilités du matériel. La réponse mesurée au cours de cette étude est l'évolution du degré d'hydrolyse (DH) au cours du temps.
- Le protocole de mesure des cinétiques réactionnelles est réalisé avec utilisation du broyage humide comme étape de prétraitement avant sonication. Afin que cette dernière étape du procédé ne soit pas limitante, la sonde à ultrasons a été réglée à sa puissance maximale, soit 82 W avec une période active de 100 %. Deux teneurs en graines ont été testées : 10 et 13,5%. Au delà, la sonde à ultrasons s'échauffe, ce qui présente un risque de détérioration du matériel. Comme précédemment, chaque essai a été réalisé à trois reprises afin de s'assurer de la reproductibilité.
- Les cinétiques obtenues, présentées sur la
figure 4 , sont superposables, aux erreurs expérimentale près. La vitesse d'hydrolyse y est rapide pendant les 30 premières minutes, pour se ralentir ensuite progressivement jusqu'à atteindre un pallier après 60 minutes de réaction, pour une valeur optimale de DH de 95%. - De toute évidence, l'efficacité de la lipase ne semble pas être affectée par cette variation de la teneur en matière sèche. Ceci semble logique car si la proportion de graines introduite dans le milieu diffère, le rapport enzyme / graine ne varie pas. Ceci signifie que ni le ratio glycérides / lipase ni la proportion de protéines par rapport à l'enzyme n'ont évolué. Ainsi, l'apport de composés potentiellement inhibiteurs est contrebalancé par l'ajout en parallèle d'une proportion identique de lipase. Le seul paramètre qui aurait pu être limitant est la quantité d'eau disponible pour que la réaction ait lieu. Les résultats expérimentaux montrent que ce n'est pas le cas.
- Cependant, le type de procédé utilisé ne permet guère d'augmenter plus la quantité de graine présente dans le milieu, car la sonde à ultrasons s'échauffe rapidement. Par ailleurs, le broyage devient impossible à réaliser dès 20% de teneur en graines pour cause de trop forte viscosité. Enfin, la décantation centrifuge n'est plus possible si la proportion de phase solide (culot) est trop élevée.
- La réactivité ne semble pas affectée par l'augmentation de la teneur en matière sèche dans le réacteur. Cependant, la viscosité du milieu croissant rapidement avec la proportion de graines, notre matériel ne permet pas de réaliser des essais avec un milieu comportant une quantité plus élevée de graines.
- On a montré que l'efficacité de la lipase lors de l'hydrolyse des glycérides dépend étroitement des interactions que ces deux familles de molécules parviennent à établir entre elles. Les ondes ultrasonores étant l'outil de cette mise en contact par le biais de la création d'interface, il est donc raisonnable de penser que de leur intensité va dépendre la réactivité dans le milieu.
- Un mélange contenant 15 % de graines de colza dans l'eau distillée est broyé pendant 5 minutes dans un mixeur ménager de type « Warring blendor ». Parallèlement, la lipase issue de Candida rugosa (Lipolyve, Lyven, Cagny, France) est solubilisée dans l'eau de manière à obtenir une concentration de 10 mg / ml. Quatre-vingt-dix grammes du broyat de graine précédemment obtenu sont additionnées de 10 grammes de solution enzymatique dans un bécher à double enveloppe de 150 ml. A ce stade, le milieu contient 13,5 % en masse de graines de colza et une quantité de lipase correspondant à 333 UL / g de graines. Le mélange est ensuite traité par les ultrasons (Vibracell, Bioblock Scientific, Illkirch, France) 5 minutes à 12, 28, 47, 64 ou 82 W (100% de période active) selon les essais. Le milieu est refroidi pendant la sonication par circulation d'eau froide dans la paroi du bécher. Après cette étape, le courant d'eau froide est immédiatement remplacé par celui provenant d'un bain thermostaté à 37°C. On laisse alors le milieu évoluer sous agitation magnétique (250 rpm) pendant 120 minutes. Le suivi de la réaction est assuré par une série de prélèvement réalisés à des temps prédéterminés. Lors de ceux-ci, 1,5 ml de milieu sont transférés dans un tube contenant 1 ml d'acide chlorhydrique et 5 ml de chloroforme. Après agitation vigoureuse, la phase organique est prélevée, séchée avec Na2SO4 anhydre, puis diluée 10 fois avant d'être injectée en CPG pour analyse. Chaque essai a été réalisé à trois reprises pour déterminer l'erreur sur la valeur expérimentale
- L'effet de la puissance ultrasonore dissipée dans le milieu réactionnel est présenté sur la
Figure 5 . La superposition des courbes de cinétique d'hydrolyse en fonction du temps nous permet une comparaison des différents résultats obtenus. Il apparaît de suite sur ce graphique que plus la puissance ultrasonore utilisée est forte, plus la vitesse de réaction est élevée. - Cette observation vérifie l'importance du rôle de l'étape de sonication du milieu. En effet, elle conditionne en grande partie la réactivité, et ces essais montrent que le contrôle de la puissance ultrasonore dissipée est primordial. Nous avions vu que les ultrasons permettent de briser les parois cellulaires et ainsi de libérer les lipides que renferme la graine. Le mécanisme de cette rupture cellulaire est lié à la cavitation engendrée par les ultrasons. L'intensité de celle-ci dépendant de la puissance des ondes, acoustiques qui la génère, il semble donc logique que l'augmentation de la puissance fournie par la sonotrode se concrétise au sein du milieu par une meilleure mise en interaction des lipides et de la lipase. Il s'ensuit alors une exaltation de la réactivité, que l'on peut observer au travers de l'amélioration des cinétiques de croissance du DH lors de l'augmentation de la puissance de sonication utilisée.
- Ainsi, les résultats obtenus confirment l'importance de la mise en interaction de la lipase et des lipides pour que l'hydrolyse des glycérides ait lieu de manière optimale.
- La comparaison des cinétiques d'hydrolyse in situ des lipides de la graine pour différentes puissances de sonication utilisées durant la préparation du milieu nous permet de montrer une influence positive de la puissance ultrasonore utilisée. L'augmentation de celle-ci permet un meilleur cassage des cellules de la graine, ce qui améliore la mise en interactions des lipides et de la lipase. Ces résultats confirment donc l'hypothèse de travail selon laquelle la réactivité du milieu réactionnel est étroitement liée aux interactions lipides /lipase.
- Nous venons de montrer que la puissance de sonication influe fortement sur la cinétique réactionnelle. Ce paramètre est également à coupler avec la durée de traitement ultrasonore appliqué. Dans cet exemple, on vise à déterminer l'influence du temps de sonication.
- La période de sonication a été fixée tour à tour à 30 sec., 1 min., 2 min., 3 min. et 5 min pour une puissance ultrasonore fixée à 64 W. L'évolution du DH en fonction du temps est utilisé comme réponse, chaque essai étant répété à trois reprises pour s'assurer de sa reproductibilité.
- Les résultats sont présentés sur la
Figure 6 . - Les cinétiques obtenues lors de l'hydrolyse des lipides du colza in situ avec différentes durées de sonication à 64W sont représentées sur la
figure 6 . Les vitesses d'hydrolyse observées sont d'autant plus rapides que la durée de la période de passage du milieu aux ultrasons est longue. Cependant, les courbes obtenues pour 3 et 5 minutes de traitement du milieu par les ultrasons sont superposables, aux erreurs expérimentales près.D'après ces résultats, la durée de sonication du milieu joue donc un rôle positif jusqu'à un certain point. Pour des temps de traitement supérieurs, un plateau est atteint. - L'effet positif de la durée de sonication semble logique au vu des résultats obtenus dans le cadre des essais sur l'impact de la puissance ultrasonore dissipée dans le milieu. L'augmentation du temps de passage aux ultrasons favorise leur action. Il s'ensuit une disruption plus complète des parois cellulaires, ce qui améliore l'accessibilité de la lipase à son substrat lipidique. Autrement dit, l'augmentation de la durée de sonication favorise les interactions entre l'huile de la graine et la lipase, ce qui explique une augmentation de la réactivité. Le pallier se justifie quant à lui l'aboutissement à un maximum du processus de lyse cellulaire pour lequel la puissance sonore introduite dans le milieu devient limitante pour la poursuite de la dégradation des structures biologiques de la graine. En conséquence, on atteint un maximum de réactivité pour une puissance ultrasonore donnée.
- Les résultats présentés dans l'exemple indiquent qu'une période de sonication de 3 minutes est suffisante pour mener l'hydrolyse dans des conditions optimales. Par contre, pour toute durée inférieure de traitement, la réactivité sera moindre.
- La durée de sonication du milieu est un paramètre important, qui joue un rôle positif sur la réactivité. L'explication de ces observations est proche de celle avancée pour justifier l'influence de la puissance ultrasonore appliquée au milieu. Un maximum est observé pour une durée de traitement supérieure ou égale à 3 minutes, au delà desquelles il n'y a plus d'amélioration des interactions entre la lipase et son substrat.
- La puissance ultrasonore dissipée dans le milieu est de 82 W et la température est fixée à 22, 27, 32, 37 ou 42°C. Les différentes cinétiques de DH obtenues sont comparées entre elles. Chaque essai est répété 3 fois et un écart-type est calculé.
- Les résultats obtenus pour chaque température sont représentés sur la
figure 7 pour permettre une comparaison. On observe que les cinétiques obtenues pour les hydrolyses réalisées à 42°C et 37°C sont totalement superposables et semblent très légèrement supérieures à celles obtenues pour une température de 32°C ou 27°C. L'évolution du DH pour les réactions menées à 27°C est quant à elle la plus faible, mais reste malgré tout assez proche de celle observée pour les autres températures. - Ces résultats démontrent clairement qu'une réactivité correcte peut avoir lieu pour des températures inférieures à 37°C. En fait, ce paramètre paraît avoir une faible incidence sur la vitesse d'hydrolyse dans la plage de 20°C explorée. Selon toute vraisemblance, il doit être possible de réaliser l'hydrolyse des triglycérides du colza sans que celle des glucosinolates ne se produise. En effet, une température de réaction proche, voire inférieure à 30°C paraît défavorable pour une activité optimale de la myrosinase (enzyme responsable de l'hydrolyse des glucosinolates), puisque son optimum de fonctionnement se situe entre 40 et 70°C (Maheshwari et al., 1981 Maheshwari P.N., Stanley. D.W., Gray J.J., 1981, Detoxification of rapeseed products. J. Food Protection, Vd. 44(6) : 459-470). A contrario, la lipase montre une activité optimale ou sub-optimale pour des températures de l'ordre de 30°C.
- La capacité pour la lipase de travailler à des températures inférieures à celles utilisées jusqu'à présent présente également un intérêt au niveau de la consommation énergétique, qui peut de cette façon être diminuée. Enfin, ces essais montrent qu'une régulation très précise de la température n'est pas nécessaire, puisque la lipase assure l'hydrolyse optimale des triglycérides de la graine en acides gras sur une plage d'environ 10°C et perd peu d'activité au delà.
- Les essais de modification de température du milieu lors de l'hydrolyse in situ de lipides de la graine de colza montrent que cette réaction est peu sensible à ce paramètre. Ceci nous ouvre des perpectives en terme d'élimination de la réaction parasite d'hydrolyse des glucosinolates hydrosolubles et inoffensifs pour la santé en des composés soufrés gênants par leur toxicité tant sur le plan nutritionnel que pour le catalyseurs industriels d'hydrogénation. Une réflexion plus approfondie est donc à poursuivre sur ce point. La faible sensibilité de la réaction à la température permet également une économie énergétique supplémentaire et l'absence de nécessité d'assurer une régulation fine de ce paramètre.
- La quantité de lipase est un second facteur déterminant pour la réactivité. La détermination de ce paramètre permet ainsi de déterminer l'influence du rapport enzyme / graines sur la réactivité et sur l'efficacité de la lipase, notamment en ce qui concerne des inhibitions de l'enzyme par des composés de la graine.
- Le protocole suivi est identique aux exemples précédents, avec une puissance ultrasonore fixée à 82 W, une température de 37°C. La quantité de lipase est quant à elle variable selon les essais, les différents rapports lipase / graines testés étant de 27,7, 55, 111, 222 et 333 UL / g de graines. Tout comme lors des expérimentations précédentes, chaque point a été réalisé 3 fois afin de déterminer la barre d'erreur expérimentale.
- Les cinétiques obtenues pour les différentes concentrations en lipase sont exposées sur la
figure 8 . On observe que la croissance du DH en fonction du temps est d'autant plus rapide que la quantité d'enzyme introduite est élevée. D'autre part aucun optimum de réactivité en fonction de la quantité de lipase ajoutée ne semble atteint. - Ces résultats confirment le rôle positif du rapport enzyme /substrat sur la réactivité.
- Afin de mieux appréhender la relation entre le rapport lipase /graine et la cinétique réactionnelle, on a étudié les vitesses initiales moyennes d'hydrolyse mesurées entre 0 et 15 minutes. La différence de DH entre 0 et 15 minutes a par conséquent été calculée à partir des résultats présentés sur cette figure.
- Cette réponse est bien représentative de la vitesse moyenne d'hydrolyse pendant cette période, puisque :

Où : - [AG] est la concentration molaire en AG,
- [MG] est la concentration molaire en MG,
- [DG] est la concentration molaire en DG,
- [TG] est la concentration molaire en TG.
- Dans la formule ci-dessus, le dénominateur représente concentration totale en radicaux acides gras, qu'il soient sous forme libre ou liée au glycérol. Cette somme reste par conséquent constante, quel que soit le DH. La différence de DH entre 0 et 15 minutes est donc égale à la quantité d'acides gras produits durant cette période, normalisée par la quantité de radicaux acide gras totaux.
- Par ailleurs, on a également rapporté la vitesse initiale moyenne d'hydrolyse à la masse de poudre enzymatique introduite dans le milieu. L'activité spécifique moyenne (AS) ainsi calculée nous permettra ainsi de déceler un éventuel effet du rapport lipase /graine sur les performances de cette enzyme. Les résultats des calculs, accompagnés de leur barre d'erreur expérimentale sont présentés sur la
figure 9 . - La différence de DH entre 0 et 15 minutes semble varier linéairement avec le rapport lipase /graines. Un ajustement linéaire a été réalisé pour confirmer cette tendance. Le coefficient de détermination de cette droite est de 0,97, ce qui signifie une bonne linéarité des résultats. Par ailleurs, la droite d'ajustement passe par toutes les barres d'erreurs, ce qui suggère que les écarts observés entre la théorie et les valeurs expérimentales sont explicables.
- La proportionnalité entre la quantité d'enzyme et la vitesse initiale de réaction nous indique que ce facteur est limitant de l'hydrolyse, pour des conditions de procédé de mise en contact données. Par ailleurs, la droite de régression passe par zéro. On ne trouve donc pas d'inhibition pour les faibles quantités de lipase.
- Cette observation est par ailleurs confortée par les calculs d'activité spécifique qui indiquent que l'enzyme conserve, aux erreurs expérimentales près, une efficacité relativement constante quelle qu'en soit la concentration.
- Cependant, ces données n'indiquent pas pour autant que l'efficacité de la lipase à l'interface est optimale. En effet, les résultats obtenus dans les exemples précédents montrent que les étapes de cassage des parois cellulaires jouent un rôle très important sur celle-ci. L'exemple le plus illustratif est la puissance de sonication du milieu, qui doit être optimale. Malgré la linéarité de la vitesse initiale de réaction en fonction de la quantité de lipase ajoutée, une inhibition compétitive à l'interface des lipides en émulsion reste présente.
- Conformément à ce qui a déjà été évoqué dans la littérature ou dans les précédents rapports d'avancement, la quantité de lipase introduite a un effet positif sur la cinétique d'hydrolyse des lipides de la graine. Le calcul des vitesses initiales nous permet de montrer que cette réponse varie linéairement avec la quantité d'enzyme ajoutée au milieu, l'activité spécifique restant quant à elle relativement stable. Il en est déduit que malgré une inhibition engendrée par une compétition pour la fixation à l'interface, la quantité de lipase introduite dans le milieu est un facteur limitant de l'hydrolyse.
- Les milieux observés sont préparés selon le même protocole que lors de l'étude de la réactivité présentée dans l'exemple précédent. Le rapport lipase/ graine est fixé à 333 UL / g de graines. Le cassage cellulaire est pour sa part assuré par un broyage humide 5 minutes suivi d'une période de 5 min. de sonication à 82 W. La proportion de graine introduite est de 13,5 % en masses. Les milieux ainsi obtenus sont laissés à réagir jusqu'à hydrolyse totale.
- Une aliquote du milieu d'hydrolyse est ensuite dilué 10 fois avant d'être monté entre lame et lamelle. L'observation se fait par transmission à l'aide d'un microscope optique Nikon Eclipse E600 (Nikon, Japon), muni d'oculaires grossissant 10x et d'objectifs plan fluor x10, x40 et x100 du même fournisseur. Les prises de vues sont réalisées grâce à une caméra digitale DMX 1200 (Nikon, Japon), les images étant enregistrées dans un ordinateur par le logiciel Lucia G (Nikon, Japon). Aucun retraitement de celles-ci n'a été effectué ultérieurement
- Trois grossissements ont été utilisés pour la réalisation des clichés. Une vue d'ensemble a tout d'abord été prise. La
Figure 10 illustre les différents constituants du milieu ainsi que son organisation après broyage et hydrolyse. C'est au sein de celle-ci que la lipase évolue et réagit avec les lipides de la graine. - Sur la
Figure 10 , on peut déjà distinguer les différentes structures observées macroscopiquement lors de la centrifugation du milieu. Les lipides situés au premier plan sont nets, tandis que les plus grosses particules qui reposent sur la lamelle après décantation sont plus floues. Sur lafigure 10 , les débris de coque très importants en taille sont notamment présents. Leurs dimensions sont de l'ordre de 100 à 200µm. Etant donné leur faible épaisseur, il n'est quasiment jamais possible de les voir autrement que de face. Les restes des cellules lysées sont également visibles. Si certaines de celles-ci, telles celles situées en haut de lafigure 10 , sont totalement vides, d'autres semblent en revanche moins affectées par les différents traitements de cassage subis. C'est le cas de l'amas cellulaire sombre localisé en bas de lafigure 9 . Les acides gras en émulsion sont également visible au premier plan. - Sur la
figure 10 , les acides gras apparaissent sous la forme d'une granulation présente sur toute la surface observée. On remarque que les gouttelettes lipidiques ne semblent pas se disperser mais plutôt s'agréger en petits amas. Ce phénomène est important pour l'efficacité de l'étape d'extraction car il indique que les tensioactifs de toutes natures qui garnissent les globules gras ne créent pas de répulsion entre ces derniers. En cas de difficultés pour la rupture de l'émulsion, seule la rigidité de l'interface peut être mise en cause. - Une meilleure vision de l'émulsion est possible à plus fort grossissement. C'est ce type de vue qui est montrée dans la
figure 11 . Cette photographe a été prise à partir de la couche grasse séparée par centrifugation, à un grossissement total de 1 000x. Cette illustration permet d'observer plus précisément les gouttelettes lipidiques. Une barre d'échelle fournit une référence pour la taille de ces gouttes grasses. Leurs dimensions sont comprises entre 5 et 15 µm. Leur surface apparaît fine et lisse, ce qui suggère que la stabilisation de l'interface est moléculaire, et ne fait pas intervenir de particule solide. Ainsi, cette observation microscopique montre que l'hydrolyse in situ se déroule au niveau d'un système émulsionné liquide /liquide. - Par ailleurs, la photo de la
Figure 11 met en évidence que la centrifugation du milieu permet une bonne séparation des lipides et des débris cellulaires issus du cassage de la graine. Par ailleurs, la tendance déjà observée à plus faible grossissement qu'ont les gouttelettes à s'associer pour former des agrégats est confirmée par cette prise de vue plus fine. - Enfin, au vu de la taille des globules gras observés, comprise globalement entre 5 et 15 µm, il est vraisemblable qu'un début de coalescence ait déjà eu lieu. En effet, d'après Wäsche et al. (1993), (Wäsche A., Luck T., Holley W., 1993. Influence of technological parameters and protein properties on the aqueous extraction and demulsification of oil from rapeseed, In Food proteins : Structure and functionality developed from the 4th Symposium on food, Schwenke K.D. (c.f.) Weinheim 198-200), la taille des oléosomes de la graine de colza est comprise entre 0,5 et 1,5 µm, soit 10 fois moindre que celle observée ici. Cette coalescence peut résulter soit de la fusion de globules gras durant le traitement de cassage des structures cellulaires natives, soit d'une instabilité naturelle de l'émulsion formée. La première hypothèse semble cependant la plus vraisemblable, car aucune évolution visible de la taille des globules gras ne semble avoir eu lieu durant la centrifugation.
- La
figure 12 est un cliché photographique pris à un grossissement intermédiaire de 400×, montre le détail d'un groupe de cellules ayant subi le procédé d'hydrolyse. Sur cette photographie, il est possible de distinguer nettement des cellules entièrement vidées de leur contenu, mais aussi des cellules renfermant encore une partie de leurs constituants. - Sur la
figure 12 , on observe qu'une homogénéisation par sonication aboutit à la perforation des parois cellulaires, sans casser complètemen t la cellule puisqu'un grand nombre de cellules sont vidées sans pour autant que leurs parois n'apparaissent endommagées à ce grossissement. - L'observation microscopique des milieux réactionnels est riche en enseignements. Elle permet ainsi de visualiser le milieu dans lequel évolue la lipase lors de la réaction. Les photomicrographies présentées dans les
figures 10 à 12 nous permettent notamment de localiser les lipides et de mieux appréhender les interactions qui ont lieu à leur surface. Ainsi, on sait désormais que la stabilisation de l'interface lipides / eau ne fait pas intervenir de particules solides, l'hydrolyse des glycérides ayant par conséquent lieu au sein d'un système liquide /liquide. Par ailleurs, les globules gras ne paraissent pas se repousser, ce qui facilite l'extraction des acides gras. Au niveau cellulaire, les observations réalisées confirment que le broyage des graines les casse relativement grossièrement, tandis que la sonication agit plus finement en perforant les parois cellulaires sans en modifier la structure de masse.
| Préparation de la gamme étalon pour le dosage du phosphore | |||||
| [PO4 2] mg/mL | 0.4 | 0.2 | 0.1 | 0.05 | 0 |
| Vanadate 0.25% (µL) | 800 | 800 | 800 | 800 | 800 |
| Molybdate 5% (µL) | 800 | 800 | 800 | 800 | 800 |
| HNO3 6N (µL) | 240 | 320 | 360 | 380 | 400 |
| H2PO4, HNO3 6N (µL) | 160 | 80 | 40 | 20 | 0 |
Claims (11)
- Procédé de préparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante, caractérisé en ce qu'il comprend les étapes suivantes :a) broyage des graines en milieu aqueux jusqu'à l'obtention d'une suspension de particules solides d'un diamètre inférieur à 500 µm ;b) ajout d'une lipase exogène dans la suspension obtenue à l'étape a) ;c) homogénéisation de la suspension contenant la lipase jusqu'à l'obtention d'un homogénat constitué d'une émulsion des lipides contenus initialement dans les graines, en mélange avec les particules solides des graines ;d) hydrolyse des lipides contenus dans l'homogénat obtenu à l'étape c) à une température comprise entre 15°C et 55°C, pendant une durée comprise entre 15 minutes et 5 heures ;e) récupération des acides gras résultant de l'hydrolyse des lipides réalisée à l'étape d).
- Procédé selon la revendication 1 , caractérisé en ce qu'à l'étape a), les graines sont ajoutées au milieu aqueux à raison d'une proportion inférieure à 20%, de préférence inférieure à 15%, en poids total du milieu aqueux contenant les graines.
- Procédé selon l'une des revendications 1 ou 2, caractérisé en ce qu'à l'étape b), la lipase est ajoutée à raison de 100 à 500 Unités, de préférence de 150 à 400 Unités de lipase par gramme du poids des graines traitées*- à l'étape a).
- Procédé selon l'une des revendications 1 à 3, caractérisé en ce que l'étape c) d'homogénéisation est réalisée par homogénéisation sous pression ou par homogénéisation par sonication.
- Procédé selon la revendication 4, caractérisé en ce que l'homogénéisation sous pression est réalisée par un ou plusieurs cycles d'homogénéisation à une pression comprise entre 25 et 1000 bars, de préférence entre 100 et 500 bars.
- Procédé selon la revendication 5, caractérisé en ce que l'homogénéisation sous pression est réalisée par deux cycles d'homogénéisation à haute pression.
- Procédé selon la revendication 4, caractérisé en ce que l'homogénéisation par sonication est réalisée à une puissance d'ultrasons supérieure à 20 Watts.
- Procédé selon l'une des revendications 1 à 7, caractérisé en ce que l'étape e) de récupération des acides gras comprend les étapes suivantes :e1) séparation des acides gras des autres constituants de l'homogénat obtenu à l'étape d), sous la forme d'une émulsion ;e2) extraction des acides gras à partir de l'émulsion avec un solvant.
- Procédé selon la revendication 8, caractérisé en ce qu'à l'étape e1), les acides gras sont séparés des autres constituants de l'homogénat obtenu à l'étape d) par obtention d'un milieu liquide à trois phases, respectivement une phase solide, une phase aqueuse et une phase d'émulsion lipidique, par centrifugation de l'homogénat, puis récupération de la phase d'émulsion lipidique.
- Procédé selon la revendication 8, caractérisé en ce qu'à l'étape e2) les acides gras sont extraits par l'eau ou par un solvant choisi parmi un alcool, un ester, un carbonate organique, une cétone.
- Procédé selon l'une des revendications 8 à 10, caractérisé en ce que l'étape e2) d'extraction des acides gras est suivie d'une étape e3) de séchage de la solution contenant les acides gras.
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| FR0210942A FR2843970B1 (fr) | 2002-09-04 | 2002-09-04 | Procede de preparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante. |
| FR0210942 | 2002-09-04 | ||
| PCT/FR2003/002636 WO2004022677A1 (fr) | 2002-09-04 | 2003-09-03 | Procede de preparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| EP1537194A1 EP1537194A1 (fr) | 2005-06-08 |
| EP1537194B1 true EP1537194B1 (fr) | 2012-10-31 |
Family
ID=31503105
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| EP03769562A Expired - Lifetime EP1537194B1 (fr) | 2002-09-04 | 2003-09-03 | Procede de preparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante |
Country Status (4)
| Country | Link |
|---|---|
| EP (1) | EP1537194B1 (fr) |
| AU (1) | AU2003278252A1 (fr) |
| FR (1) | FR2843970B1 (fr) |
| WO (1) | WO2004022677A1 (fr) |
Families Citing this family (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| FR3029738B1 (fr) * | 2014-12-10 | 2016-12-30 | Agronutrition | Procede de preparation d'une composition de traitement de plante, composition obtenue et ses utilisations |
| CN110564494A (zh) * | 2019-10-17 | 2019-12-13 | 东北农业大学 | 一种超声波预处理溶剂法提取大豆油脂的方法 |
Family Cites Families (7)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US3640725A (en) * | 1969-07-02 | 1972-02-08 | Rohm & Haas | Soybean fractionation employing a protease |
| FR2283902A1 (fr) * | 1974-09-06 | 1976-04-02 | Cpc International Inc | Procede de degradation enzymatique d'une matiere riche en proteine |
| SE450927B (sv) * | 1983-12-22 | 1987-08-17 | Svenska Lantmennens Riksforbun | Sett och anordning for behandling av raps- eller rypsfro sa att mjolkavkastningen hos mjolkkor hojs samt anvendning av den erhallna produkten |
| DE3843027A1 (de) * | 1988-12-21 | 1990-06-28 | Battelle Institut E V | Biotechnisches verfahren zur gewinnung von oel und ggf. fettsaeuren aus oelhaltigen pflanzen |
| US5616215A (en) * | 1991-04-19 | 1997-04-01 | Novo Nordisk A/S | Method of making paper from pulp treated with lipase and an aluminum salt |
| EP0619950B1 (fr) * | 1993-02-09 | 1998-10-28 | The Quaker Oats Company | Procédé de fractionnement d'avoine et produit en dérivé |
| US6685975B2 (en) * | 2000-05-19 | 2004-02-03 | Biozyme Systems Inc. | Process for recovering bone and oil from animal byproducts |
-
2002
- 2002-09-04 FR FR0210942A patent/FR2843970B1/fr not_active Expired - Fee Related
-
2003
- 2003-09-03 EP EP03769562A patent/EP1537194B1/fr not_active Expired - Lifetime
- 2003-09-03 WO PCT/FR2003/002636 patent/WO2004022677A1/fr not_active Ceased
- 2003-09-03 AU AU2003278252A patent/AU2003278252A1/en not_active Abandoned
Also Published As
| Publication number | Publication date |
|---|---|
| WO2004022677A1 (fr) | 2004-03-18 |
| FR2843970A1 (fr) | 2004-03-05 |
| FR2843970B1 (fr) | 2006-02-17 |
| AU2003278252A8 (en) | 2004-03-29 |
| EP1537194A1 (fr) | 2005-06-08 |
| AU2003278252A1 (en) | 2004-03-29 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| US6166231A (en) | Two phase extraction of oil from biomass | |
| Yusoff et al. | Aqueous enzymatic extraction of Moringa oleifera oil | |
| US8557297B2 (en) | Method for processing crustaceans and products thereof | |
| CN103635564B (zh) | 一种分离磷脂的方法 | |
| CA2915320C (fr) | Nanoparticules de selenium elementaire et procede de preparation | |
| Law et al. | Conversion and recovery of saponifiable lipids from microalgae using a nonpolar solvent via lipase-assisted extraction | |
| EP1261684A2 (fr) | Procede de fractionnement d'une huile de cuisson | |
| Di Caprio et al. | Extraction of microalgal starch and pigments by using different cell disruption methods and aqueous two‐phase system | |
| FR3090008A1 (fr) | Procédé de production d'une huile brute riche en polyphénol par extraction solide/liquide | |
| Liu et al. | Effects of pretreatment on the yield of peanut oil and protein extracted by aqueous enzymatic extraction and the characteristics of the emulsion | |
| Vikbjerg et al. | Comparative evaluation of the emulsifying properties of phosphatidylcholine after enzymatic acyl modification | |
| Liu et al. | Application of an aqueous enzymatic–ultrasound cavitation method for the separation of Sapium sebiferum seed kernel oil | |
| WO2004022677A1 (fr) | Procede de preparation d'acides gras par hydrolyse in situ des lipides contenus dans les graines d'une plante | |
| US20110278496A1 (en) | Defoaming composition for high acid strength media | |
| Abdullah et al. | Lipase-catalyzed synthesis of red pitaya (Hylocereus polyrhizus) seed oil esters for cosmeceutical applications: process optimization using response surface methodology | |
| EP4479741B1 (fr) | Methode et système de determination d'un parametre d'une composition d'origine naturelle permettant de determiner le traitement d'elimination en heteroatomes le plus approprie de cette composition | |
| WO1994008028A1 (fr) | Procede de preparation, par voie enzymatique, d'aromes, notamment des ionones et des aldehydes en c6 a c¿10? | |
| WO2017167914A1 (fr) | Procédé d'extraction de glycolipides et glycolipides obtenus | |
| FR2940112A1 (fr) | Procede d'extraction de composes presents au sein d'un materiau vegetal frais par cryobroyage et enzymolyse | |
| EP1846570B1 (fr) | Procede de detection et/ou de mesure a haut debit d'une activite lipasique ou phospholipasique | |
| Bao et al. | A novel efficient method for the simultaneous recycle of amygdalin and oil from bitter apricot kernels: Ultrasonication based on natural deep eutectic solvent | |
| EP0785010A1 (fr) | Procédé de traitement d'un milieu aqueux pollué par des hydrocarbures et composition désémulsifiante et dispersante à base d'esters de polyglycérols | |
| EP4151741A1 (fr) | Procédé pour la synthèse enzymatique d'un biodiésel à partir de lipides usagés | |
| EP3866960A1 (fr) | Émulsion et émulsion multiple de pickering avec des particules de bois | |
| de Oliveira et al. | Kinetic and thermodynamic evaluation of lipid and pigment extraction from Nannochloropsis oculata by ultrasound-assisted and conventional methods |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| PUAI | Public reference made under article 153(3) epc to a published international application that has entered the european phase |
Free format text: ORIGINAL CODE: 0009012 |
|
| 17P | Request for examination filed |
Effective date: 20050404 |
|
| AK | Designated contracting states |
Kind code of ref document: A1 Designated state(s): AT BE BG CH CY CZ DE DK EE ES FI FR GB GR HU IE IT LI LU MC NL PT RO SE SI SK TR |
|
| AX | Request for extension of the european patent |
Extension state: AL LT LV MK |
|
| DAX | Request for extension of the european patent (deleted) | ||
| RIN1 | Information on inventor provided before grant (corrected) |
Inventor name: MECHLING, ERIC Inventor name: MOULOUNGUI, ZEPHIRIN |
|
| 17Q | First examination report despatched |
Effective date: 20071126 |
|
| GRAP | Despatch of communication of intention to grant a patent |
Free format text: ORIGINAL CODE: EPIDOSNIGR1 |
|
| GRAS | Grant fee paid |
Free format text: ORIGINAL CODE: EPIDOSNIGR3 |
|
| GRAA | (expected) grant |
Free format text: ORIGINAL CODE: 0009210 |
|
| AK | Designated contracting states |
Kind code of ref document: B1 Designated state(s): AT BE BG CH CY CZ DE DK EE ES FI FR GB GR HU IE IT LI LU MC NL PT RO SE SI SK TR |
|
| REG | Reference to a national code |
Ref country code: GB Ref legal event code: FG4D Free format text: NOT ENGLISH Ref country code: CH Ref legal event code: EP |
|
| REG | Reference to a national code |
Ref country code: AT Ref legal event code: REF Ref document number: 582045 Country of ref document: AT Kind code of ref document: T Effective date: 20121115 |
|
| REG | Reference to a national code |
Ref country code: IE Ref legal event code: FG4D Free format text: LANGUAGE OF EP DOCUMENT: FRENCH |
|
| REG | Reference to a national code |
Ref country code: DE Ref legal event code: R096 Ref document number: 60342491 Country of ref document: DE Effective date: 20130103 |
|
| REG | Reference to a national code |
Ref country code: FR Ref legal event code: AU Effective date: 20130205 |
|
| REG | Reference to a national code |
Ref country code: AT Ref legal event code: MK05 Ref document number: 582045 Country of ref document: AT Kind code of ref document: T Effective date: 20121031 |
|
| REG | Reference to a national code |
Ref country code: NL Ref legal event code: VDEP Effective date: 20121031 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: NL Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: ES Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20130211 Ref country code: SE Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: FI Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: SI Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: CY Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: GR Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20130201 Ref country code: PT Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20130228 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: AT Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: CZ Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: BG Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20130131 Ref country code: DK Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: SK Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: EE Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: IT Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 Ref country code: RO Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 |
|
| PLBE | No opposition filed within time limit |
Free format text: ORIGINAL CODE: 0009261 |
|
| STAA | Information on the status of an ep patent application or granted ep patent |
Free format text: STATUS: NO OPPOSITION FILED WITHIN TIME LIMIT |
|
| 26N | No opposition filed |
Effective date: 20130801 |
|
| REG | Reference to a national code |
Ref country code: DE Ref legal event code: R097 Ref document number: 60342491 Country of ref document: DE Effective date: 20130801 |
|
| BERE | Be: lapsed |
Owner name: INSTITUT NATIONAL DE LA RECHERCHE AGRONOMIQUE (IN Effective date: 20130930 Owner name: INSTITUT NATIONAL POLYTECHNIQUE DE TOULOUSE (I.N. Effective date: 20130930 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: MC Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 |
|
| REG | Reference to a national code |
Ref country code: CH Ref legal event code: PL |
|
| GBPC | Gb: european patent ceased through non-payment of renewal fee |
Effective date: 20130903 |
|
| REG | Reference to a national code |
Ref country code: DE Ref legal event code: R119 Ref document number: 60342491 Country of ref document: DE Effective date: 20140401 |
|
| REG | Reference to a national code |
Ref country code: IE Ref legal event code: MM4A |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: LI Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20130930 Ref country code: BE Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20130930 Ref country code: GB Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20130903 Ref country code: CH Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20130930 Ref country code: IE Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20130903 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: DE Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20140401 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: TR Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT Effective date: 20121031 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: LU Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20130903 Ref country code: HU Free format text: LAPSE BECAUSE OF FAILURE TO SUBMIT A TRANSLATION OF THE DESCRIPTION OR TO PAY THE FEE WITHIN THE PRESCRIBED TIME-LIMIT; INVALID AB INITIO Effective date: 20030903 |
|
| REG | Reference to a national code |
Ref country code: FR Ref legal event code: PLFP Year of fee payment: 13 |
|
| PGFP | Annual fee paid to national office [announced via postgrant information from national office to epo] |
Ref country code: FR Payment date: 20150925 Year of fee payment: 13 |
|
| REG | Reference to a national code |
Ref country code: FR Ref legal event code: ST Effective date: 20170531 |
|
| PG25 | Lapsed in a contracting state [announced via postgrant information from national office to epo] |
Ref country code: FR Free format text: LAPSE BECAUSE OF NON-PAYMENT OF DUE FEES Effective date: 20160930 |