JP2009000104A - 前赤血球段階のマラリアのポリペプチド分子 - Google Patents
前赤血球段階のマラリアのポリペプチド分子 Download PDFInfo
- Publication number
- JP2009000104A JP2009000104A JP2008139896A JP2008139896A JP2009000104A JP 2009000104 A JP2009000104 A JP 2009000104A JP 2008139896 A JP2008139896 A JP 2008139896A JP 2008139896 A JP2008139896 A JP 2008139896A JP 2009000104 A JP2009000104 A JP 2009000104A
- Authority
- JP
- Japan
- Prior art keywords
- sequence
- polypeptide
- molecule
- lsa
- antibody
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Withdrawn
Links
Images






Classifications
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/002—Protozoa antigens
- A61K39/015—Hemosporidia antigens, e.g. Plasmodium antigens
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/385—Haptens or antigens, bound to carriers
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P33/00—Antiparasitic agents
- A61P33/02—Antiprotozoals, e.g. for leishmaniasis, trichomoniasis, toxoplasmosis
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P33/00—Antiparasitic agents
- A61P33/02—Antiprotozoals, e.g. for leishmaniasis, trichomoniasis, toxoplasmosis
- A61P33/06—Antimalarials
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/44—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans from protozoa
- C07K14/445—Plasmodium
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
- C07K16/18—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans
- C07K16/20—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans from protozoa
- C07K16/205—Plasmodium
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/60—Medicinal preparations containing antigens or antibodies characteristics by the carrier linked to the antigen
- A61K2039/6018—Lipids, e.g. in lipopeptides
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K2319/00—Fusion polypeptide
-
- Y—GENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y02—TECHNOLOGIES OR APPLICATIONS FOR MITIGATION OR ADAPTATION AGAINST CLIMATE CHANGE
- Y02A—TECHNOLOGIES FOR ADAPTATION TO CLIMATE CHANGE
- Y02A50/00—TECHNOLOGIES FOR ADAPTATION TO CLIMATE CHANGE in human health protection, e.g. against extreme weather
- Y02A50/30—Against vector-borne diseases, e.g. mosquito-borne, fly-borne, tick-borne or waterborne diseases whose impact is exacerbated by climate change
-
- Y—GENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10—TECHNICAL SUBJECTS COVERED BY FORMER USPC
- Y10S—TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10S530/00—Chemistry: natural resins or derivatives; peptides or proteins; lignins or reaction products thereof
- Y10S530/82—Proteins from microorganisms
- Y10S530/822—Protozoa
Landscapes
- Health & Medical Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Tropical Medicine & Parasitology (AREA)
- General Health & Medical Sciences (AREA)
- Medicinal Chemistry (AREA)
- Organic Chemistry (AREA)
- Veterinary Medicine (AREA)
- Immunology (AREA)
- Public Health (AREA)
- Pharmacology & Pharmacy (AREA)
- Animal Behavior & Ethology (AREA)
- Mycology (AREA)
- Genetics & Genomics (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Microbiology (AREA)
- Molecular Biology (AREA)
- Epidemiology (AREA)
- Biochemistry (AREA)
- Biophysics (AREA)
- Toxicology (AREA)
- Chemical Kinetics & Catalysis (AREA)
- General Chemical & Material Sciences (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Zoology (AREA)
- Gastroenterology & Hepatology (AREA)
- Peptides Or Proteins (AREA)
- Medicines Containing Antibodies Or Antigens For Use As Internal Diagnostic Agents (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
- Compositions Of Macromolecular Compounds (AREA)
- Organic Low-Molecular-Weight Compounds And Preparation Thereof (AREA)
- Pharmaceuticals Containing Other Organic And Inorganic Compounds (AREA)
Abstract
【解決手段】ポリペプチド(I)を除く、特定な配列からなる、LSA-3抗原を表すアミノ酸配列のアミノ酸を少なくとも10個連続して含有するポリペプチド分子。−RDELFNELLNSVDVNGEVKENILEESQVNDDIFNSLVKSVQQEQQHNVEE−VEESVEENDEESVEENVEENVENNDDGSVASSVEESIASSVDESIDSSIE−ENVAPTVEEIVAPTVEEIVAPSVVEKCAPSVEESPATSPEESPAEMLKER(729S)(I)
【選択図】なし
Description
a)チンパンジーを免疫化するために、寄生虫の同一発育段階における他の抗原(LSA-1など)とともに、LSA-3の一部を用いると、両分子またはLSA-3のみに応答している動物の血液中には寄生虫が存在せず、肝臓内の寄生虫がかなり減少し、且つ細胞免疫に関する応答の指標である単球が活発に動員されている徴候を示し;
b)本疾病が風土病である地域では、スポロゾイトによる天然感染から免れている者と、彼らの抗LSA-3抗体に関する応答との間には、極めて明確な相関が観察され;
c)放射線照射したスポロゾイトを注射して免疫化されたボランティア8人のうち、スポロゾイト感染が起こらなかった4人には、LSA-3に対して誘導された抗体が各人に見出されているが、血液感染が生じた残りの4人のボランティアには、何れも抗体は見出されていない;
d)既述したWO 92/13884中のペプチドDG729に対して産生された抗体は、マウスモデルでの探索を十分に可能にする、マウスの寄生虫「P. yoelii」のスポロゾイトおよび肝臓段階のものと交叉反応をする。インビトロでは、DG729で免疫精製したヒトの抗体は、極めて低濃度でも、「P. yoelii」のスポロゾイトがマウス肝細胞中に侵入するのを阻止する。インビボでは、DG729で免疫化されたマウスは、「P. yoelii」のスポロゾイトによる感染から、完全にまたは部分的に免れる;
e)最後に、いくつかのエピトープ、特に分子の非反復部位中のエピトープは、単球によるインターフェロンγの分泌を刺激し、該伝達物質によって、寄生虫の肝臓内での発育を阻害することが可能となる(メロウクら(Mellouk S. et al.)、The Jour. Of Immun. 139、4192-4195、1987);
f)LSA-3の中で(リポ)ペプチドNR2に相当する領域の配列が、27サンプルで分析された:実験室の株(NF54, K1, Palo Alto, T9/96)が4つ、マダガスカル分離株が3つ、ビルマ分離株が3つ、ブラジル分離株が5つ、象牙海岸からの分離株が7つ、タイ分離株が5つである。分析された300塩基の中には突然変異は見られず、すなわち1以上のB、Th、およびCTLエピトープが含まれる、免疫学的に重要な本領域は100%保存されていた;
g)クローンT9/96から入手し得る配列(630アミノ酸)の疎水性クラスタープロットによって、抗原の構造、特にREペプチドの構造に関する情報、とりわけ該REペプチドをデザインし、且つ1以上の主要Bエピトープを含有する中央反復領域に関する情報が得られた。(ガボリオットら(Gaboriot et al.)、(1987):疎水性クラスター分析:アミノ酸配列を比較、分析するための、効率的な新方法、FEBS Letters、224:149-155);この方法から、α-ヘリックス構造を形成する傾向が、非常に強いことが予想される。該反復領域は、バリンおよびイソロイシン残基の間に、酸性残基またはプロリン残基が交互に存在するという、顕著な規則性を示す。該ヘリックスの表面に、疎水性基が配置されているということは、該分子の全体に沿った、一定の方向に従って、疎水性境界が、あるヘリックス表面から別の表面へ徐々にシフトしていることを想起せしめ、クローンDG729のペプチド配列のHCP(hydrophobic cluster plot)を図示する図4bに見られるように、おそらくコイル-コイル構造またはパッケージングに関わっている;
h)LSA-3抗原に対する免疫応答が極めて多岐にわたるということを実証した後、我々は、肝臓中の寄生虫周辺に局在し得るという、応答性細胞(responder cell)の能力について分析した。組換え抗原で免疫化したマウスでは、10μmのポリスチレンビーズに吸収させた各ペプチドを門脈内注射することによって、48時間後には、抗原(寄生虫を模倣している)周囲へリンパ球が集中し、その後5日目には、マクロファージ系に属する細胞によって、強力な補強が起こるのが観察される。
−RDELFNELLNSVDVNGEVKENILEESQVNDDIFNSLVKSVQQEQQHNVEE
−VEESVEENDEESVEENVEENVENNDDGSVASSVEESIASSVDESIDSSIE−
ENVAPTVEEIVAPTVEEIVAPSVVEKCAPSVEESVAPSVEESVAEMLKER
(729S)
−RDELFNELLNSVDVNGEVKENILEESQVNDDIFNSLVKSVQQEQQHN
−DELFNELLNSVDVNGEVKENILEESQ, (NRI)
−LEESQVNDDIFSNSLVKSVQQEQQHNV, (NRII)
−VESVAPSVEESVAPSVEESVAENVEESV. (729RE)
を除く、図2に示されている配列認識番号2で表され、LSA-3を表示しているアミノ酸配列のうち、少なくとも10の連続したアミノ酸を含有するポリペプチド分子である。
Leu Leu Ser Asn Ile Glu Glu Pro Lys Glu Asn Ile Ile Asp Asn Leu Leu Asn Asn Ile (CT1)
と少なくとも70%以上の相同性を示すペプチド分子と同様に、先に明示した分子の何れかと少なくとも70%以上の相同性を示すペプチドは全て本発明の一部を成す。
(a)図1の配列認識番号1に図示されているようなヌクレオチド鎖のつながり、または
(b)図2の配列認識番号2に図示されているようなヌクレオチド鎖のつながり、または
(c)図1または図2のものと、70%以上の相同性を示す鎖のつながり、または
(d)(a)、(b)、または(c)で示されているものと相補的なヌクレオチド鎖のつながり
のうちの1つに対応する核酸配列は、本発明の一部を成す。
−場合によっては、適切に選択した2つのDNAプライマーを用いて、標準的手法によって、前記ポリペプチドをコードするヌクレオチド配列の量を予め増幅するステップと、
−適切な培養液中で、前記ポリペプチドをコードするヌクレオチド配列を具備する、本発明による核酸を含むベクターによって、予め形質転換させた宿主細胞を培養するステップと、且つ
−上記培養液から、前記形質転換された宿主細胞によって産生されたポリペプチドを回収するステップ
とを具備する、本発明のポリペプチドを調製する方法にも及ぶ。
S1: GTGATGAACTTTTTAATGAATTATTAAA (配列認識番号4)
S2: TGTTGTTCTTGTTGAACACTTTTTACTAA (配列認識番号5)
図1に図示されているLSA-3/K1遺伝子上での、これらの位置は、それぞれ695〜722および829〜799(逆方向に読まれる)であり、
あるいはぺア:
6.1: GGTATCGAACTGAGGAAATAAAGG(配列認識番号6)
6.2: CATAGCAGGAACATCAACATCCAC(配列認識番号7)
それぞれ、6.1の位置は2668〜2692および6.2の位置は3456〜3433(逆方向に読まれる)である。
本発明のペプチドは、ペプチド合成の標準的手法によって、調製してもよい。該合成は、均質な溶液中または固相中で行ってもよい。例えば、ブンシュ(E. Wunsch)編集の、「有機化学の方法(Methods in Organic Chemistry)」、第15-IおよびIIと題する著作(チーメ(Thieme)、シュツットガルト、1994)の中で、ホーベン−ウェイル(Houben-Weyl)が記述している均質溶液中での合成手法、あるいは「固相ペプチド合成」(J. Am. Chem. Soc., 45, 2149-2154)と題する論文中で、メリーフィールド(R.D. Merrifield)が記述している手法を用いることができるであろう。
オリゴマー化によって、本発明によるモノマーペプチドの免疫原性を増強せしめることが可能となる。このような数に関する情報を限定と解してはならないが、これらのオリゴマーは、例えば、2〜10個のモノマー単位を含有し得る。
最大200までのヌクレオチド(または2重鎖の核酸の場合には200bp)が含まれる、本発明の核酸を調製するための適切な方法は、以下のステップ:
−「生物有機化学(Bioorganic Chemistry) 4」、274-325ページ(1986)に記載されている、自動化されたβ-シアノエチルフォスフォールアミダイト法を用いるDNA合成、
−そのようにして得られた核酸を、適切なベクター中にクローニングし、適切なプローブでハイブリダイゼーションすることによって、該核酸を回収する
を具備する。
1)配列決定
連続的に予防処置を受けた宣教師(missionary)の血清を用いて、寄生虫クローンT9/96から得られた遺伝子ライブラリーの初期スクリーニングを行うことによって、我々は、熱帯熱マラリア原虫のサイクルにおけるスポロゾイトおよび/または肝臓段階で発現される分子に対応するクローンを120単離することができた。クローン729Sをプローブとして用いて、ファージラムダgt10中へクローニングされた巨大EcoRI断片を含有する、既に上述したタイ株K1のゲノムライブラリーをスクリーニングした。該遺伝子ライブラリーから、遺伝子全体を含有する6.85kbの挿入断片を精製し、配列および特性決定をするために、pUC18プラスミドに再クローニングした。熱帯熱マラリア原虫は、ゲノムのA:T塩基が非常に多く(80%)、使用できる制限部位が希少であるため、およびプラスミドベクター中に挿入する場合、ある種の断片のクローニングが不安定あるいは不可能でさえあるために、このアプローチは多くの場合困難である。
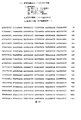
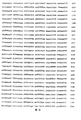
a)疎水性シグナルペプチドをコードする3’末端のミニエキソン1;
b)コンセンサススプライシング供与部位と受容部位の間に含まれる、短いイントロン(168塩基対);
c)1.8kbの組織化された領域をコードし、アミノ酸4個のブロック7つの配置、およびグリコシルホスファチジルイノシトール(GPI)型の固定を行う領域に相当するかもしれない3’疎水性領域から成り立っている、5kbの第2のエキソン
を示す。
ブロック 1:(aa223) VEEK VEES VEEN DEES VEEN VEEN VEEN DDGS VASS VEES IASS VDES IDSS IEEN (aa278)
VEESVAEN VEESVAEN VEESVAEN VEESVAEN
VEEIVAPT VEEIVAPT VEEIVAPS VVESVAPS VEESVEEN
VEESVAEN VEESVAEN VEESVAEN VEESVAEN VEESVEEN
VEEIVAPT VEEIVAPT VEEIVAPS VVESVAPS VEESVEEN
VEESVAEN VEESVAEN VEESVAEN VEESVAEN VEESVAEN
VEESVAEN VEESVAEN
VEEIVAPT VEEIVAPT VEEIVAPS VVESVAPS VEESVEEN
VEESVAEN VEESVAEN VEESVAEN VEESVAEN
VEEIVAPT VEEIVAPT VEEIVAPS VVESVAPS VEESVEEN
VEESVAEN VEESVAEN VEESVAEN
VEEIVAPT VEEIVAPT VEEIVAPS VVESVAPS VEESVEEN
VEESVAEN VEESVAEN VEESVAEN VEESVAEN
VEEIVAPT VEEIVAPT VEEIVAPS VVESVAPS VEESVEEN
VEESVAEN VEESVAEN VEESVAEN
VEESVAPT VEEIVAPS VEESVAPS VEESVAEN (aa818)
(aa1537) DEDI EEDV EEDI EEDI EEDK VEDI DEDI DEDI GEDK DEVI (aa1576)
ブロック 1:VEEK VEES VEEN DEES VEEN VEEN VEEN DDGS VASS VEES IASS VDES IDSS IEEN
ブロック 2:VAPT VEEIVAPT VEEIVAPS VVESVAPS VEESVAPS
VEESVAEN VEESVAEN
VEEIVAPS
VEESVAEN VEESVAEN VEESVAEN VEESVAEN VEESVAEN
VEEIVAPT VEESVAPT VEEIVAPT VEESVAPT VEEIVVPS VEESVAPS
VEESVAEN VEESVAEN VEESVAEN VEESVAEN VEESVAEN
VEEIVAPS VEEIVAPT
VEESVAEN
挿入配列DG729およびK1株のエキソン2の別の領域を原核細胞性発現ベクターpGEX(インビトロゲン社(InVitrogen Corp、サンディエゴ、アメリカ)が販売しているベクター)中にクローニングした。該ベクターは、マンソン住血吸虫(Schistosoma mansoni)のグルタチオンS-トランスフェラーゼとの融合タンパク質を産生し、グルタチオン-アガロースビーズに対する親和性によって、該組換えタンパク質を容易に精製することが可能となる。これらのベクターから発現されるペプチドは:
−全LSA-3タンパク質に対しては:RECタンパク質
−または、729S断片に対しては:729PGEX
と表示する。
2.1. 同一の発育段階にある寄生虫の別の抗原とともに、LSA-3の一部で予め免疫化を行い、且つポイントa)で上述した効果が現れているチンパンジーのダークを、2〜3年後、同一組み合わせの抗原に相当するペプチドおよび組換えタンパク質で再び免疫化した。低用量(2×10⁴スポロゾイト)の試験的感染、次に高用量(5×10⁶)の試験的感染に対して、このチンパンジーが保護されていることが再度明らかになる。最初の試験期間と同様に、ごく少数の検出可能なシゾント周囲へのリンパ球−単球浸潤(局所的防御を示している)とともに、高用量での試験後、肝臓内に検出されるシゾントの数が顕著に減少するのが観察されている。
別のチンパンジー(下記の実施例7および8にて記載されている動物)をLSA-3抗原単独、すなわちリポペプチドNR2の次に、3つの総計がLSA-3分子の95%をカバーし、且つラテックス小球に吸着されている組換えタンパク質(GST-729、GST-NN、GST-3PC)で免疫化した。この動物は、極微量の血中寄生虫血症を示し、試験的感染後の肝臓シゾントの数が対照に比べて90%減少しているので、高用量(8×10⁶スポロゾイト)での試験的感染に対して、部分的に保護されていることが明らかである。
LSA-3抗原の一部のみ、すなわち、ペプチドの組み合わせ、リポペプチドの組み合わせ、次に組み換えタンパク質の組み合わせ(これらはLSA-3分子の95%に相当し、モンタニド(Montanide)ISA-51(SEPPIC、オルセー河岸(Quai d’Orsay)75、フランス)中に乳化されている)によって免疫化されたチンパンジーは、中用量(1×10⁵スポロゾイト)での試験的感染に対して、部分的に保護されていることが明らかである。実際に、4匹の対照(前赤血球抗原LSA-1、SALSAまたはSTARPで免疫化されたチンパンジー、および免疫化していない対照動物1匹)に比べて、この動物は、血中への寄生虫の出現が非常に遅く、血中寄生虫症の最高値が低く、寄生虫血症の減少が早い(3日に対して24時間)。これらの結果は、試験的感染によって該動物に引き起こされた肝臓型の数が著しく減少していることの反映であり、ゲルダで得た結果と一致するものである。本件に関しては、肝臓型の検査は行わなかった。
ペプチドLSA-3-NR1、-REおよびリポペプチド-NR2、-CT1とともに、各動物に対して、他の前赤血球抗原(LSA-1、SALSAまたはSTARP)に相当するペプチドで免疫化した3匹のチンパンジーは、3匹とも
−ペプチドNR1、NR2、およびRE上に存在するBエピトープに対する高度の液性応答:抗体は、ペプチドおよび組換え体を認識するのみならず、熱帯熱マラリア原虫のスポロゾイトおよび肝臓段階への免疫蛍光によって評価する場合、寄生虫上のネイティブ分子に対して強度の陽性である(ただし、赤血球段階については陰性である);
−4つのLSA-3ペプチド、並びに熱帯熱マラリア原虫および「Plasmodium yoelii」(まだ特性が明らかになっていない、LSA-3の相同体を有する)のスポロゾイト表面に存在するネイティブTエピトープに対する、高度かつ特異的なリンパ増殖応答:
を示す。
a)合成分子が実際にそれらを代表的するものであることを証明し;
b)感染時に、既往性2次免疫応答が得られるという見込みが十分にあることをそれらが意味する;事実、これは試験時のチンパンジー(ヌリア)において観られたことである
ので重要なポイントとなる。LSA-1およびSTARPのような、他の抗原については、同一の2次免疫応答が得られなかったという事実によって、この観察の重要性は増大する。
2つのペプチドLSA-3-NR1および-RE、並びに2つのリポペプチド-NR2および-CT1で免疫化した後、LSA-3分子の95%に相当し、上記の小球に吸着せしめた組換えタンパク質で再度刺激したヨザル(Aotus trivirgatus)は、これらのペプチド自身に存在するTエピトープに対する、高度且つ特異的なリンパ増殖応答を示す。
CTLsを同定するために用いた方法は、フィドックら(Fidock et al.)(1994)の「J. Immunol.」 153:190、またはボッティウスら(Bottius et al.)(1996)の「J. Immuol. 」156:2874-2884に記載されているものである。
4.1.免疫化された異なる動物において、種々のペプチドにより引き起こされた抗体応答の比較
用いた方法は、ベーアら(Behr et al.)(1992)の「J. Immunol.」149:3321中に記載されている方法である。

表IIは、異なる段階(スポロゾイト、肝臓、および血液)の熱帯熱マラリア原虫、「P.yoelii」、および齧歯類マラリア病原虫(P.berghei)の表面上にあるネイティブの抗原に対する、チンパンジーから得られた血清の、免疫蛍光による抗体力価を示す。
図5は、ペプチド729NR1および729RE、並びにリポペプチド729NR2およびCT1で免疫化する前および後の、チンパンジーのヌリアの血清中に存在する免疫グロブリンの量を図示している。
放射線照射したスポロゾイトの注射によって免疫化された、8人のボランティアのうち、スポロゾイトに感染していない4人のそれぞれから、抗-LSA-3抗体が見出されている;血液感染に至った、残り4人のボランティアでは全く見出されていない。
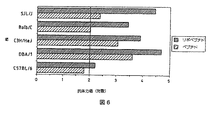
初代肝細胞培養、スポロゾイト、抗体および間接蛍光テストを調製するのに用いた技術は、メロウクらの「世界保健機構公報(Bulletin of the World Health Organization)」、68:52-59、1990に詳述されている。下表Vは、抗679断片抗体または他のペプチド由来の断片に対して得られた抗体のうちの何れかで行った免疫蛍光において得られた結果を比較している。左側のカラムは、「P. yoelii」に感染させたBalb/cマウスの肝細胞中で、培養48時間後に検出されるシゾントの数を示し、右側のカラムは、齧歯類マラリア病原虫に感染させた後の同一パラメーターを示す。
−3/3のマウスが、最少感染用量の10倍の投与から防御されている
−3/3のマウスが、2回目の試験から防御されている
−2/3のマウスが、3回目の試験から防御されている
用いた小球は、直径0.50μmのポリビーズ(Polybead)(登録商標)ポリスチレン小球(Polysciences、Inc.)(ref.07307)であり、その上に組換え体またはペプチドが受動的に吸着されている。実際には、ネズミの場合、1回の注射当たり50μgの抗原を50μlの小ビーズと接触させている;吸着した抗原の正確な量は、測定していない。チンパンジーの場合には、200μgの抗原および200μlのビーズを用いて、同様の操作を行う。
LSA-3抗原から生じるリポペプチド729NRIIで、静脈内ルートからチンパンジーのゲルダを免疫化した。4回目の注射から9日後に採血している。5μg/mlのペプチド729NRII(10U/mlの組換えIL-2を第3日目に添加)とともに、インビトロでPBMCsをインキュベートした。15日目に、濃度0.5μg/mlのPHAを用いて作られた自系芽球(autologous blasts)に対する細胞毒活性を調べた。該芽球は5μg/mlのペプチド729NRII、対照ペプチドすなわちRESAとともに、またはペプチドなしで一晩プレインキュベートした。ペプチドは、テスト(8時間)の間は添加していない。ウェルあたりの標的数は、5000である。
インターフェロンは、ヒト培養肝細胞中での熱帯熱マラリア原虫の発育を阻害する活性を有することが示されている(メロウクらの「The Journal of Immunology」、139巻、12号:41-92、41-95、1987)。本発明のペプチドを用いて得た結果は以下の通り:
ポリペプチドNR2で免疫化して、組換えDG729で追加免疫をしたチンパンジーのゲルダは、LSA-3ペプチド、特にペプチド729NRIの存在下で、高レベルのIFN-γを分泌することが可能なPBMCsを有する。本結果は、同一のタンパク質で免疫化したチンパンジーのダークで確認した。免疫化していない対照である、チンパンジーのブラムの血中には、LSA-3ペプチドに対するインターフェロンは全く見られない。
(i) 配列特性:
(A) 長さ:28塩基対
(B) 型:ヌクレオチド
(C) 鎖の数:一本鎖
(D) トポロジー:直鎖状
(ii)配列の種類:DNA(ゲノミック)
(xi)配列の記載:配列認識番号:4:
GTGATGAACT TTTTAATGAA TTATTAAA
(2)配列認識番号:5のための情報:
(i) 配列特性:
(A) 長さ:29塩基対
(B) 型:ヌクレオチド
(C) 鎖の数:一本鎖
(D) トポロジー:直鎖状
(ii)配列の種類:DNA(ゲノミック)
(xi)配列の記載:配列認識番号:5:
TGTTGTTCTT GTTGAACACT TTTTACTAA
(2)配列認識番号:6のための情報:
(i) 配列特性:
(A) 長さ:25塩基対
(B) 型:ヌクレオチド
(C) 鎖の数:一本鎖
(D) トポロジー:直鎖状
(ii)配列の種類:DNA(ゲノミック)
(xi)配列の記載:配列認識番号:6:
GGTATCGAAA CTGAGGAAAT AAAGG
(2)配列認識番号:7のための情報:
(i) 配列特性:
(A) 長さ:24塩基対
(B) 型:ヌクレオチド
(C) 鎖の数:一本鎖
(D) トポロジー:直鎖状
(ii)配列の種類:DNA(ゲノミック)
(xi)配列の記載:配列認識番号:7:
CATAGCAGGA ACATCAACAT CCAC
Claims (26)
- 図2に示されているアミノ酸配列のアミノ酸を連続して10以上含有するポリペプチド分子であって、以下のポリペプチド:
−RDELFNELLNSVDVNGEVKENILEESQVNDDIFNSLVKSVQQEQQHNVEE
−VEESVEENDEESVEENVEENVENNDDGSVASSVEESIASSVDESIDSSIE−
ENVAPTVEEIVAPTVEEIVAPSVVEKCAPSVEESVAPSVEESVAEMLKER
(729S)
−RDELFNELLNSVDVNGEVKENILEESQVNDDIFNSLVKSVQQEQQHN
−DELFNELLNSVDVNGEVKENILEESQ, (NRI)
−LEESQVNDDIFSNSLVKSVQQEQQHNV, (NRII)
−VESVAPSVEESVAPSVEESVAENVESSV. (729RE)
を除くポリペプチド分子。 - 請求項1に記載の分子であって、前記配列のアミノ酸を20以上連続して含有していることを特徴とする分子。
- 請求項2に記載の分子であって、前記配列のアミノ酸を50以上連続して含有していることを特徴とする分子。
- 請求項1〜3の何れか1項に記載の分子のうちの1つと70%以上の相同性を示すポリペプチド分子。
- 以下の配列:Leu Leu Ser Asn Ile Glu Glu Pro Lys Glu Asn Ile Ile Asp Asn Leu Leu Asn Asn Ile (CT1)
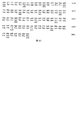
と70%以上の相同性を示すことを特徴とするポリペプチド分子。 - 請求項1〜4の何れか1項に記載のポリペプチド分子であって、図3に図示されている配列と少なくとも70%の相同性を示すことを特徴とするポリペプチド分子。
- 請求項1〜6の何れか1項に記載のポリペプチドを1以上および薬学的賦形剤を1以上含有することを特徴とする免疫原性組成物。
- 他の免疫原成分に加えて、請求項1〜6の何れか1項に記載のポリペプチド分子を含有する抗マラリアワクチン組成物。
- 請求項8に記載のワクチン組成物であって、さらに1以上のエピトープを含み、且つLSA-1、SALSAまたはSTARP分子からなる群から得られる分子を含有することを特徴とする組成物。
- 請求項9に記載の組成物であって、2以上の免疫原を含み、第1の免疫原が、以下のポリペプチド:
−図2のポリペプチド、
−NRI、
−NRII
から選択され、第2の免疫原が、SALSA、SALSA I、およびSALSA IIからなる群から選択されることを特徴とする組成物。 - 請求項1〜6の何れか1項に記載のポリペプチド分子を特異的に認識するポリクローナル抗体またはモノクローナル抗体。
- 熱帯熱マラリア原虫に感染している可能性を有する個体中のマラリアをインビトロで診断する方法であって、組織または生体液に存在する可能性のある抗体と前記ポリペプチド分子との免疫反応を可能する条件下で、個体から得た組織または生体液を請求項1〜8の何れか1項に記載の分子と接触せしめることと、形成される可能性のある抗原/抗体複合体をインビトロで検出することを含んでなる方法。
- 請求項12に記載の方法であって、請求項1〜6の何れか1項に対応するポリペプチド分子、およびスポロゾイト段階の抗原、すなわち、LSA-1、SALSAまたはSTARPから得られる他の分子との混合物と組織または生体液を接触せしめることを特徴とする方法。
- 熱帯熱マラリア原虫に感染している可能性を有する個体中のマラリアをインビトロで診断する方法であって、生体組織に存在する可能性のある熱帯熱マラリア原虫に特異的なタンパク質と前記抗体との間のインビトロ免疫反応を可能にする条件下で、個体から得た組織または生体液を請求項11に記載の抗体と接触せしめることと、形成される可能性のある抗原/抗体複合体をインビトロで検出することを具備することを特徴とする方法。
- 請求項12または13の何れかに記載のインビトロマラリア診断用キットであって、
請求項1〜6の何れか1項に記載の分子を少なくとも1つまたは数個と、
反応に適した媒質を構成する試薬であって、免疫反応によって産生された抗原/抗体複合体の検出を可能にする試薬と
を具備することを特徴とし、特に上述のポリペプチド分子がラベルされていない場合、これらの試薬はラベルを有することができ、またはラベルされた試薬によって認識することができるような試薬であるキット。 - インビトロマラリア診断用キットであって:
−請求項11に記載の抗体と、
反応に適した媒質を構成する試薬であって、免疫反応によって産生された抗原/抗体複合体の検出を可能にする試薬と
を具備することを特徴とし、特に上述のポリペプチド分子がラベルされていない場合、これらの試薬はラベルを有することができ、または順次、ラベルされた試薬によって認識することができるような試薬であるキット。 - 抗マラリアワクチンの調製における請求項1〜6の何れか1項に記載のポリペプチド分子の使用。
- マラリア治療を目的とした医薬品を調製するための、請求項11に記載の1以上のポリクローナル抗体またはモノクローナル抗体の使用。
- 薬学的に受容できる賦形剤とともに、活性物質として請求項11に記載のポリクローナル抗体またはモノクローナル抗体を1以上含有する薬学的組成物。
- 以下の配列:
(a)図1の配列認識番号1に図示されているヌクレオチド鎖のつながり、または
(b)図2の配列認識番号2に図示されているヌクレオチド鎖のつながり、
(c)図1もしくは図2のものと70%以上の相同性を示す鎖のつながり、または
(d) (a)、(b)もしくは(c)に示されているものと相補的なヌクレオチド鎖のつながり
のうちの1つによって特徴付けられる核酸配列。 - 請求項1〜6の何れか1項に記載のポリペプチド分子をコードする配列を含有する請求項20に記載の核酸。
- 請求項20または請求項21に記載のヌクレオチド配列をクローニングするための、および/または上述の配列によってコードされるポリペプチドを発現させるための組換えベクターであって、複製に不可欠でない部位のうちの1つに前記配列を含み、特に前記ベクターが、プラスミド型、コスミド型またはファージ型であるようなベクター。
- 請求項22に記載のベクターであって、該ベクターが、No.I-1573でCNCMに寄託され、pK1.2.と称されるプラスミドであることによって特徴付けられるベクター。
- 請求項1〜6の何れか1項に記載のポリペプチド分子および該分子を吸着させる支持体からなる化合物。
- 請求項24に記載の化合物であって、該支持体がラテックスもしくはポリスチレンの小球またはビーズからなることを特徴とする化合物。
- マラリアに感染している、または感染している可能性のある個体を免疫化するための請求項24および25の何れか1項に記載の化合物の使用。
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| FR9507007A FR2735478B1 (fr) | 1995-06-13 | 1995-06-13 | Molecules polypeptidiques de stade pre-erythrocytaire du paludisme |
Related Parent Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP9502711A Division JPH11508130A (ja) | 1995-06-13 | 1996-06-12 | 前赤血球段階のマラリアのポリペプチド分子 |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2009000104A true JP2009000104A (ja) | 2009-01-08 |
Family
ID=9479927
Family Applications (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP9502711A Pending JPH11508130A (ja) | 1995-06-13 | 1996-06-12 | 前赤血球段階のマラリアのポリペプチド分子 |
| JP2008139896A Withdrawn JP2009000104A (ja) | 1995-06-13 | 2008-05-28 | 前赤血球段階のマラリアのポリペプチド分子 |
Family Applications Before (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP9502711A Pending JPH11508130A (ja) | 1995-06-13 | 1996-06-12 | 前赤血球段階のマラリアのポリペプチド分子 |
Country Status (12)
| Country | Link |
|---|---|
| US (3) | US6191270B1 (ja) |
| EP (2) | EP1621547B1 (ja) |
| JP (2) | JPH11508130A (ja) |
| AT (2) | ATE458002T1 (ja) |
| AU (1) | AU719163B2 (ja) |
| CA (1) | CA2221029A1 (ja) |
| DE (2) | DE69635077T2 (ja) |
| DK (2) | DK1621547T3 (ja) |
| ES (1) | ES2248816T3 (ja) |
| FR (1) | FR2735478B1 (ja) |
| PT (1) | PT833917E (ja) |
| WO (1) | WO1996041877A2 (ja) |
Families Citing this family (13)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| FR2672290B1 (fr) * | 1991-02-05 | 1995-04-21 | Pasteur Institut | Sequences peptidiques specifiques des stades hepatiques de p. falciparum porteuses d'epitopes capables de stimuler les lymphocytes t. |
| US20030161840A1 (en) * | 1992-10-19 | 2003-08-28 | Institut Pasteur | Plasmodium falciparum antigens inducing protective antibodies |
| FR2697022B1 (fr) * | 1992-10-19 | 1994-12-16 | Pasteur Institut | Antigènes de Plasmodium falciparum capables d'induire des anticorps protecteurs à large spectre - Application à la vaccination. |
| FR2735478B1 (fr) * | 1995-06-13 | 1997-08-22 | Pasteur Institut | Molecules polypeptidiques de stade pre-erythrocytaire du paludisme |
| FR2771640B1 (fr) * | 1997-12-03 | 2000-02-11 | Inst Nat Sante Rech Med | Micelles mixtes de lipopeptides pour l'induction d'une reponse immunitaire et leurs utilisations a des fins therapeutiques |
| EP1201250A1 (en) * | 2000-10-25 | 2002-05-02 | SMITHKLINE BEECHAM BIOLOGICALS s.a. | Immunogenic compositions comprising liver stage malarial antigens |
| WO2002092628A2 (fr) * | 2001-05-16 | 2002-11-21 | Institut Pasteur | Antigenes de plasmodium falciparum et leurs applications vaccinales et diagnostiques |
| ES2346043T3 (es) | 2002-04-05 | 2010-10-08 | Institut Pasteur | Identificacion de las regiones rd1 y rd5 asociadas con la virulencia que permite el desarrollo de vacunas mejoradas de m. bovis bcg y m. microti. |
| EP2314603A3 (en) * | 2002-10-15 | 2011-05-18 | Intercell AG | Nucleic acids coding for adhesion factors of group B streptococcus, adhesion factors of group B streptococcus and futher uses thereof |
| KR101035111B1 (ko) * | 2004-06-30 | 2011-05-19 | 주식회사 엘지생명과학 | 말라리아 플라스모듐 팔시파룸의 면역학적 측정방법 및이에 사용되는 측정 수단 |
| US8401159B2 (en) * | 2005-11-30 | 2013-03-19 | On-Q Telecom Systems Co., Inc. | Data provision to a virtual personal assistant for handling calls in a communication system |
| EP2648744B1 (en) | 2010-12-06 | 2020-06-03 | MalVa GmbH | Malaria vaccines based on pre-erythrocytic antigens from p. falciparum |
| CN117069819B (zh) * | 2023-09-13 | 2024-03-19 | 南华大学 | 一种黑腹狼蛛抗菌肽lc-amp-i1及其应用 |
Citations (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| WO1992013884A1 (fr) * | 1991-02-05 | 1992-08-20 | Institut Pasteur | Sequences peptidiques specifiques des stades hepatiques de p. falciparum porteuses d'epitopes capables de stimuler les lymphocytes t. |
| JPH11508130A (ja) * | 1995-06-13 | 1999-07-21 | アンスティテュ・パストゥール | 前赤血球段階のマラリアのポリペプチド分子 |
Family Cites Families (4)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| EP0014815A3 (de) * | 1978-12-20 | 1980-10-29 | Ciba-Geigy Ag | Peptidderivate, Verfahren zu deren Herstellung und Zwischenprodukte sowie pharmazeutische Präparate mit einer dieser Verbindungen |
| US6270771B1 (en) * | 1988-10-06 | 2001-08-07 | Institut Pasteur | Peptide sequences specific for the hepatic stages of P. falciparum bearing epitopes capable of stimulating the T lymphocytes |
| FR2679909B1 (fr) * | 1991-07-31 | 1995-08-25 | Pasteur Institut | Polypeptides aptes a induire in vivo des anticorps inhibant l'invasion de globules rouges par des merozouites de p. falciparum, produits apparentes et leur application comme vaccin. |
| FR2697022B1 (fr) * | 1992-10-19 | 1994-12-16 | Pasteur Institut | Antigènes de Plasmodium falciparum capables d'induire des anticorps protecteurs à large spectre - Application à la vaccination. |
-
1995
- 1995-06-13 FR FR9507007A patent/FR2735478B1/fr not_active Expired - Fee Related
-
1996
- 1996-06-12 DE DE69635077T patent/DE69635077T2/de not_active Expired - Lifetime
- 1996-06-12 US US08/973,462 patent/US6191270B1/en not_active Expired - Lifetime
- 1996-06-12 ES ES96922107T patent/ES2248816T3/es not_active Expired - Lifetime
- 1996-06-12 AT AT05016651T patent/ATE458002T1/de not_active IP Right Cessation
- 1996-06-12 WO PCT/FR1996/000894 patent/WO1996041877A2/fr not_active Ceased
- 1996-06-12 AU AU63096/96A patent/AU719163B2/en not_active Ceased
- 1996-06-12 DK DK05016651.1T patent/DK1621547T3/da active
- 1996-06-12 JP JP9502711A patent/JPH11508130A/ja active Pending
- 1996-06-12 DE DE69638127T patent/DE69638127D1/de not_active Expired - Lifetime
- 1996-06-12 DK DK96922107T patent/DK0833917T3/da active
- 1996-06-12 EP EP05016651A patent/EP1621547B1/fr not_active Expired - Lifetime
- 1996-06-12 EP EP96922107A patent/EP0833917B1/fr not_active Expired - Lifetime
- 1996-06-12 CA CA002221029A patent/CA2221029A1/fr not_active Abandoned
- 1996-06-12 PT PT96922107T patent/PT833917E/pt unknown
- 1996-06-12 AT AT96922107T patent/ATE302276T1/de not_active IP Right Cessation
-
2000
- 2000-12-22 US US09/742,096 patent/US7056518B2/en not_active Expired - Fee Related
-
2005
- 2005-08-04 US US11/196,400 patent/US20050287166A1/en not_active Abandoned
-
2008
- 2008-05-28 JP JP2008139896A patent/JP2009000104A/ja not_active Withdrawn
Patent Citations (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| WO1992013884A1 (fr) * | 1991-02-05 | 1992-08-20 | Institut Pasteur | Sequences peptidiques specifiques des stades hepatiques de p. falciparum porteuses d'epitopes capables de stimuler les lymphocytes t. |
| JPH11508130A (ja) * | 1995-06-13 | 1999-07-21 | アンスティテュ・パストゥール | 前赤血球段階のマラリアのポリペプチド分子 |
Also Published As
| Publication number | Publication date |
|---|---|
| US20020155441A1 (en) | 2002-10-24 |
| AU6309696A (en) | 1997-01-09 |
| DE69638127D1 (de) | 2010-04-01 |
| DE69635077D1 (de) | 2005-09-22 |
| WO1996041877A2 (fr) | 1996-12-27 |
| WO1996041877A3 (fr) | 1997-01-23 |
| HK1084403A1 (zh) | 2006-07-28 |
| US7056518B2 (en) | 2006-06-06 |
| ATE458002T1 (de) | 2010-03-15 |
| DE69635077T2 (de) | 2006-05-18 |
| DK1621547T3 (da) | 2010-06-07 |
| AU719163B2 (en) | 2000-05-04 |
| CA2221029A1 (fr) | 1996-12-27 |
| EP0833917B1 (fr) | 2005-08-17 |
| PT833917E (pt) | 2005-11-30 |
| EP0833917A2 (fr) | 1998-04-08 |
| ES2248816T3 (es) | 2006-03-16 |
| EP1621547A1 (fr) | 2006-02-01 |
| EP1621547B1 (fr) | 2010-02-17 |
| ATE302276T1 (de) | 2005-09-15 |
| DK0833917T3 (da) | 2005-12-05 |
| FR2735478A1 (fr) | 1996-12-20 |
| US6191270B1 (en) | 2001-02-20 |
| FR2735478B1 (fr) | 1997-08-22 |
| US20050287166A1 (en) | 2005-12-29 |
| JPH11508130A (ja) | 1999-07-21 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| US6472519B1 (en) | Plasmodium falciparum antigens inducing protective antibodies | |
| US5928901A (en) | Molecules containing at least one peptide sequence carrying one or several epitopes characteristic of a protein produced by P. falciparum in hepatocytes and compositions containing them | |
| US7438917B2 (en) | Peptide sequences specific for the hepatic stages of P. falciparum bearing epitopes capable of stimulating the T lymphocytes | |
| US7056518B2 (en) | Malarial pre-erythrocytic stage polypeptide molecules | |
| CA2337754C (en) | Recombinant multivalent malarial vaccine against plasmodium falciparum | |
| EP0275196B1 (en) | Protein copolymer malaria vaccine | |
| US20100150951A1 (en) | Plasmodium falciparum antigens inducing protective antibodies | |
| US5690941A (en) | Molecules containing at least one peptide sequence carrying one or several epitopes characteristic of a protein produced by P. falciparum at the sporozoite stage and in the hepatocytes | |
| EP0522136B1 (en) | Protective malaria sporozoite surface protein immunogen and gene | |
| US5599543A (en) | Immunogenic four amino acid epitope against Plasmodium vivax | |
| WO2001055181A2 (en) | Recombinant multivalent malarial vaccines against plasmodium vivax | |
| EP0353823A1 (en) | Immunologically active peptide conjugate PPD-(NANP)n useful as an antimalaria vaccine | |
| HK1084403B (en) | Conjugates of malarial pre-erythrocytic stage polypeptide molecules and lipids | |
| Chai | The humoral response to a chemically defined synthetic vaccine comprised of epitopes derived from the circumsporozoite protein of Plasmodium berghei | |
| PT100757A (pt) | Polipeptidos aptos para induzir "in vivo"anticorpos capazes de inibir a invasao de globulos vermelhos por merozoitos de "p.falciparum", produtos aparentados e sua aplicacao na producao de composicoes de vacinacao |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20081111 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20090212 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20090217 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20090306 |
|
| A02 | Decision of refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A02 Effective date: 20100511 |
|
| A761 | Written withdrawal of application |
Free format text: JAPANESE INTERMEDIATE CODE: A761 Effective date: 20100728 |