JP2009055902A - 改良抗IgE抗体及びポリペプチドの改良方法 - Google Patents
改良抗IgE抗体及びポリペプチドの改良方法 Download PDFInfo
- Publication number
- JP2009055902A JP2009055902A JP2008151343A JP2008151343A JP2009055902A JP 2009055902 A JP2009055902 A JP 2009055902A JP 2008151343 A JP2008151343 A JP 2008151343A JP 2008151343 A JP2008151343 A JP 2008151343A JP 2009055902 A JP2009055902 A JP 2009055902A
- Authority
- JP
- Japan
- Prior art keywords
- antibody
- ige
- residues
- binding
- antibodies
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Granted
Links
Images






Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/11—DNA or RNA fragments; Modified forms thereof; Non-coding nucleic acids having a biological activity
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P37/00—Drugs for immunological or allergic disorders
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P37/00—Drugs for immunological or allergic disorders
- A61P37/02—Immunomodulators
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P37/00—Drugs for immunological or allergic disorders
- A61P37/02—Immunomodulators
- A61P37/06—Immunosuppressants, e.g. drugs for graft rejection
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P37/00—Drugs for immunological or allergic disorders
- A61P37/08—Antiallergic agents
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P43/00—Drugs for specific purposes, not provided for in groups A61P1/00-A61P41/00
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
- C07K16/42—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against immunoglobulins
- C07K16/4283—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against immunoglobulins against an allotypic or isotypic determinant on Ig
- C07K16/4291—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against immunoglobulins against an allotypic or isotypic determinant on Ig against IgE
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K2317/00—Immunoglobulins specific features
- C07K2317/20—Immunoglobulins specific features characterized by taxonomic origin
- C07K2317/24—Immunoglobulins specific features characterized by taxonomic origin containing regions, domains or residues from different species, e.g. chimeric, humanized or veneered
-
- Y—GENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10—TECHNICAL SUBJECTS COVERED BY FORMER USPC
- Y10S—TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10S424/00—Drug, bio-affecting and body treating compositions
- Y10S424/81—Drug, bio-affecting and body treating compositions involving autoimmunity, allergy, immediate hypersensitivity, delayed hypersensitivity, immunosuppression, immunotolerance, or anergy
-
- Y—GENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10—TECHNICAL SUBJECTS COVERED BY FORMER USPC
- Y10S—TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
- Y10S530/00—Chemistry: natural resins or derivatives; peptides or proteins; lignins or reaction products thereof
- Y10S530/868—Chemistry: natural resins or derivatives; peptides or proteins; lignins or reaction products thereof involving autoimmunity, allergy, immediate hypersensitivity, delayed hypersensitivity, immunosuppression, or immunotolerance
Landscapes
- Health & Medical Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Organic Chemistry (AREA)
- Immunology (AREA)
- Life Sciences & Earth Sciences (AREA)
- General Health & Medical Sciences (AREA)
- Engineering & Computer Science (AREA)
- Medicinal Chemistry (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Genetics & Genomics (AREA)
- Molecular Biology (AREA)
- Biochemistry (AREA)
- Public Health (AREA)
- Veterinary Medicine (AREA)
- Animal Behavior & Ethology (AREA)
- Pharmacology & Pharmacy (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Biophysics (AREA)
- General Chemical & Material Sciences (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Biomedical Technology (AREA)
- Zoology (AREA)
- Wood Science & Technology (AREA)
- General Engineering & Computer Science (AREA)
- Biotechnology (AREA)
- Physics & Mathematics (AREA)
- Plant Pathology (AREA)
- Microbiology (AREA)
- Transplantation (AREA)
- Pulmonology (AREA)
- Peptides Or Proteins (AREA)
- Medicines Containing Antibodies Or Antigens For Use As Internal Diagnostic Agents (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Breeding Of Plants And Reproduction By Means Of Culturing (AREA)
Abstract
【解決手段】(1)異性化を受けやすいアスパラチル残基を同定し;(2)代替残基を置換し、得られた変異体を標的分子に対する親和性でスクリーニングする。好適な実施態様では、残基の置換方法は、ファージディスプレイでの親和性成熟(AMPD)である。更に好適な実施態様では、ポリペプチドは抗体で、標的分子は抗原である。更に好適な実施態様では、抗体は抗IgEであり、標的分子はIgEである。他の実施態様では、IgEに対する親和性が改善された抗IgE抗体である。
【選択図】図12
Description
IgEは、広範囲にわたって病気が広がっている馴染みのある副鼻腔炎、過敏症I型、食物アレルギー及び喘息等のアレルギー反応を媒介する免疫グロブリンファミリーのメンバーである。IgEはB細胞又はBリンパ球により分泌され、その表面で発現する。IgEは、FcεRIIとして知られている低親和性IgEレセプターにそのFc領域が結合してB細胞(及び単球、好酸球及び血小板)と結合する。哺乳動物がアレルゲンに暴露されると、抗原に特異的な表面結合性IgE抗体を有するB細胞が「活性化」され、IgE分泌プラズマ細胞に発達する。次に、生じたアレルゲン特異性IgEが血流を通って循環し、FcεRIとして知られている高親和性レセプターにより、組織中のマスト細胞及び血液中の好塩基球の表面に結合するようになる。これにより、マスト細胞及び好塩基球はアレルゲンに対して敏感になる。続いてアレルゲンに暴露されると、好塩基球及びマスト細胞のFcεRIの架橋を引き起こし、その結果、臨床的過敏症及びアナフィラキシーの原因であるヒスタミン、ロイコトリエン及び血小板活性化因子、好酸球及び好中球走化因子及びサイトカインIL-3、IL-4、IL-5及びGM-CSFが放出される。
アナフィラキシー性過敏症における生理的変化には、肺の細気管支及び気管支の強度の収縮、平滑筋の萎縮及び毛細管の拡張が含まれ得る。しかし、この病状の素因は、遺伝及び環境要因間の相互作用により生じると思われる。アナフィラキシー性過敏症を誘発する一般的な環境アレルゲンは、花粉、食物、ハウスダスト、ダニ、動物の鱗屑、カビの胞子及び昆虫毒であることが発見されている。アトピー性アレルギーはアナフィラキシー性過敏症に関連しており、例えば喘息、アレルギー性鼻炎及び結膜炎(枯草熱)、湿疹、蕁麻疹及び食物アレルギー等の疾患を引き起こす。しかし、生命に危険性を及ぼす病状のアナフィラキシーであるアナフィラキシーショックは、通常、昆虫に刺されるか又は親の投薬(parental medication)により誘発される。
近年、過敏症I型及びアナフィラキシー性過敏症のための治療方策として、好塩基球及びマスト細胞において見出される高親和性レセプター(FcεRI)に対する結合からIgをブロックする試みがなされており、その結果、病理的症状に至るヒスタミンと他のアナフィラキシー性因子の放出が防止される。
組換えモノクローナル抗体は、アスパラギン酸及びアスパラギン残基の異性化のような、全てのポリペプチド又はタンパク質に影響を及ぼす分解反応を被る。以下の図Aに示すように、-Asp-Gly-配列のアスパラギン酸残基(I)は環状のイミド中間体(II)を介してイソアスパラート(III)に異性化し得る(GeigerとClarke, J. Biol. Chem. 262:785-794(1987))。アスパラギン酸(I)のカルボン酸側鎖は隣接するグリシンのアミドの窒素と反応し、環状のアスパラギン酸中間体(II)を形成し、ついで、-イソアスパラギン酸-グリシン-残基(III)になる。この反応における平衡、速度及びpH依存性は、逆相高速液体クロマトグラフィーにより分離されたペプチドモデルにおいて研究されている(OliyaiとBorchardt, Pharm Res. 10, 95-102(1993))。異性化を受ける傾向は、-Asp-Gly-配列を含む分子部分の局所的柔軟性にも依存すると考えられる(Geiger & Clarke, 上掲)。
よって、アスパルチル異性化の「不活性化」事象を示さないばかりか、改良されていないポリペプチドの親和性に等しいかより高い標的分子(例えば抗原)に対する親和性を示す、抗体を含む改良ポリペプチドの創製が必要とされている。
本発明は、(1)異性化を起こしやすいアスパルチル残基の同定;(2)代替残基による置換と、標的分子に対する親和性についての得られた変異体のスクリーニングを含む組合わせ工程により、標的分子に対する親和性を有するポリペプチドを改良する方法に関する。好ましい実施態様において、残基の置換方法はファージディスプレイでの親和成熟(affinity maturation)(AMPD)である。さらに好ましい実施態様において、ポリペプチドは抗体であり、標的分子は抗原である。より好ましい実施態様において、抗体は抗IgEであり、標的分子はIgEである。
他の実施態様において、本発明はIgEに対する親和性が改良された抗IgE抗体に関する。
好ましい実施態様において、抗IgE抗体は、図2に「e27」及び「e26」と標識した配列フラグメントを有する重鎖及び軽鎖を含んでなる。あるいは、抗IgE抗体は、図12において「E27」及び「E26」と標識された全長の重及び軽鎖配列を含んでなる。
また本発明は、医薬上の有用性を有する、改良された親和性の抗IgE又はその機能性フラグメントの組成物にも関する。さらに本発明は、改良された親和性の抗IgE抗体を含有する製造品にも関する。
またさらなる他の実施態様において、本発明はIgE媒介性のヒスタミンの生成を低減又は阻害する方法に関する。
また他の実施態様において、本発明は、本発明の抗体又はその機能性フラグメントの投与による、IgE媒介性疾患を治療する方法に関する。
本発明の他の側面は、以下の詳細な記載及び請求の範囲により明らかになるであろう。
配列番号:2は図1に示すMaE11の可変重鎖配列を表す。
配列番号:3は図1に示すF(ab)-2の可変重鎖配列を表す。
配列番号:4は図1に示すhumIIIの可変重鎖配列を表す。
配列番号:5は図1に示すMaE11の可変軽鎖配列を表す。
配列番号:6は図1に示すF(ab)-2の可変軽鎖配列を表す。
配列番号:7は図1に示すhumIIIの可変軽鎖配列を表す。
配列番号:8は図2に示すe26及びe27の可変軽鎖配列を表す。
配列番号:9は図2に示すe426の可変軽鎖配列を表す。
配列番号:10は図2に示すe25の可変軽鎖配列を表す。
配列番号:11は図2に示すe27の可変重鎖配列を表す。
配列番号:12は図2に示すe25、e26及びe426の可変重鎖配列を表す。
配列番号:13は図12に示すe25の全長可変軽鎖配列を表す。
配列番号:14は図12に示すe25の全長重鎖配列を表す。
配列番号:15は図12に示すe26の全長軽鎖配列を表す。
配列番号:16は図12に示すe26の全長重鎖配列を表す。
配列番号:17は図12に示すe27の全長軽鎖配列を表す。
配列番号:18は図12に示すe27の全長重鎖配列を表す。
配列番号:19は図13に示すe26とe27の可変軽鎖Fabフラグメントを表す。
配列番号:20は図13に示すe26の可変重鎖Fabフラグメントを表す。
配列番号:21は図13に示すe27の可変重鎖Fabフラグメントを表す。
配列番号:22は図14に示すe26のsFvフラグメントを表す。
配列番号:23は図14に示すe27のsFvフラグメントを表す。
配列番号:24は図15に示すe26とe27の可変軽鎖F(ab)'2フラグメントを表す。
配列番号:25は図15に示すe26の可変重鎖F(ab)'2フラグメントを表す。
配列番号:26は図15に示すe27の可変重鎖F(ab)'2フラグメントを表す。
本出願において記載された特定の参考文献、特許出願及び特許は、本明細書に出典を明示して取り込まれているものとして読むべきものである。
定義:
この出願を通して使用される用語は、当業者にとって通常かつ典型的な意味に解釈されるものである。しかし、本出願人は、以下の用語については、特に以下に定義されるような定義が付与されることを望む。
「タンパク質」又は「ポリペプチド」という用語は交換可能に使用されることを意図する。それらは翻訳後修飾(例えばグリコシル化又はホスホリル化)に関係なく、ペプチド又はアミド結合により互いに結合した2又はそれ以上のアミノ酸の鎖を指す。抗体が特にこの定義の範囲内に含まれることを意図している。
本発明のポリペプチドは、各サブユニットが別々のDNA配列によりコードされた1を越えるサブユニットを含有していてもよい。
「同一性」又は「相同性」という用語は、配列を整列させ、配列全体に対してける最大のパーセント同一性を得るために必要ならば間隙を導入し、如何なる保存的置換も配列同一性の一部と考えないとした、比較される対照配列の残基と同一である候補配列中のアミノ酸残基のパーセンテージを意味するものと解釈されるべきものである。N末端もしくはC末端の伸長も挿入も何れも同一性あるいは相同性を低減ささせるものではないと解釈される。アラインメントのためのコンピュータプログラム及び方法は従来からよく知られている。配列同一性は配列分析ソフトウエア(例えばSequence Analysis Software Package, Genetics Computer Group, University of Wisconsin Biotechnology Center, 1710 University Ave., Madison, WI53705)を使用して測定することができる。このソフトウエアは、種々の置換、欠失及び他の修飾に対して相同性の程度を割り当てることにより、類似の配列をマッチングさせる。
任意の脊椎動物種由来の抗体(免疫グロブリン)の軽鎖には、その定常ドメインのアミノ酸配列に基づいて、カッパ(κ)及びラムダ(λ)と呼ばれる2つの明確に区別されるタイプの一つが充当される。
非ヒト(例えばマウス)抗体の「ヒト化」形とは、キメラ免疫グロブリン、免疫グロブリン鎖あるいはそれらのフラグメント(例えばFv、Fab、Fab'、F(ab')2あるいは抗体の他の抗原結合サブ配列)であって、非ヒト免疫グロブリンに由来する最小配列を含むものである。大部分においてヒト化抗体はレシピエントの相補性決定領域(CDR)の残基が、マウス、ラット又はウサギのような所望の特異性、親和性及び能力を有する非ヒト(ドナー抗体)のCDRの残基によって置換されたヒト免疫グロブリン(レシピエント抗体)である。ある場合には、ヒト免疫グロブリンのFvフレームワーク領域残基は、対応する非ヒト残基によって置換される。更に、ヒト化抗体は、レシピエント抗体にも、移入されたCDRもしくはフレームワーク配列にも見出されない残基を含んでもよい。これらの修飾は抗体の特性を更に洗練し、最適化するために行われる。一般に、ヒト化抗体は、全てあるいはほとんど全てのCDR領域が非ヒト免疫グロブリンのものに対応し、全てあるいはほとんど全てのFR領域がヒト免疫グロブリン共通配列のものである、少なくとも1つ、典型的には2つの可変ドメインの実質的に全てを含む。ヒト化抗体は、最適には免疫グロブリン定常領域(Fc)、典型的にはヒトの免疫グロブリンの定常領域の少なくとも一部を含んでなる。更なる詳細は、Jonesら, Nature 321, 522-525(1986);Reichmanら, Nature 332, 323-329(1988)及びPresta, Curr. Op. Struct. Biol. 2, 593-596(1992)を参照のこと。
「単鎖Fv」すなわち「sFv」抗体フラグメントは、抗体のVH及びVLドメインを含有し、これらのドメインはポリペプチド単鎖に存在する。一般的に、Fvポリペプチドは、sFvが抗体結合のための所望の構造を形成できるように、VHとVLドメインとの間にポリペプチドリンカーを更に含んでいる。sFvについてのレビューには、例えば、Pluckthun, The Pharmacology of Monoclonal Antibodies, vol.113, Rosenburg and Moore eds. Springer-Verlag, New York, pp.269-315(1994)を参照されたい。
「アミノ酸」及び「アミノ酸類」という用語は、天然に生じる全てのL-α-アミノ酸を指す。アミノ酸はA部:抗体の調製:(iv)変異体抗体の生成の元に以下に記載されるようにして同定される。「アミノ酸変異体」という用語は未変性のアミノ酸配列と比べてそのアミノ酸配列中に幾らかの差異がある分子を指す。
本発明で使用される「宿主細胞」は原核生物又は真核生物宿主である。適切な宿主細胞の例は、B部ベクター、宿主細胞及び組換え方法:(vii)宿主細胞の選択及び形質転換に記載する。
「トランスフェクション」とは、コード配列が実際に発現しようとしまいと、宿主細胞に発現ベクターが取り込まれることを指す。
「トランスフェクトされた宿主細胞」及び「形質転換された」という用語は、細胞内へのDNAの導入を指す。細胞は「宿主細胞」と称され、原核生物でも真核生物でもよい。典型的な原核生物の宿主細胞には大腸菌の様々な菌株が含まれる。典型的な真核生物の宿主細胞は哺乳動物、例えばチャイニーズハムスターの卵巣細胞又はヒト由来の細胞である。導入されるDNA配列は、宿主細胞と同じ種からのものでも宿主脂肪とは異なる種からのものでもよく、あるいはある外来性又はある相同的DNAを含むハイブリッドDNA配列であってもよい。
「調節配列」という用語は特定の宿主生物中における作動可能に結合させたコード配列の発現に必要なDNA配列を指す。例えば原核生物に適する調節配列は、プロモーター、任意にはオペレーター配列、及びリボソーム結合部位を包含する。真核細胞はプロモーター、ポリアデニル化シグナル及びエンハンサーを利用することが知られている。
「疾患」は、ポリペプチドによる治療により恩恵を得るあらゆる症状のことである。これには、慢性及び急性の疾患又は当該疾患に対する素因を哺乳動物に与える病理的状態を含む病気が含まれる。
治療の補助のためにここで使用される「免疫抑制剤」という用語は、移植片が移植される宿主の免疫系を抑制又はマスクするように作用する物質を指す。これにはサイトカインの生成を抑制し、自己抗原の発現をダウンレギュレート又は抑制し、あるいはMHC抗原をマスクする物質が含まれる。このような抗原の例には、2-アミノ-5-アリール-5-置換ピリミジン(米国特許第4665077号を参照)、アザチオプリン(又はアザチオプリンに対する有害反応の場合はシクロホスファミド);ブロモクリプチン;(米国特許第4120649号に記載されているように、MHC抗原をマスクする)グルタルアルデヒド;MHC抗原に対する抗イディオテイプ抗原及びNHCフラグメント;シクロスポリンA;ステロイド類、例えばグルココルチコステロイド、例えばプレドニゾン、メチルプレドニゾン、及びデキサメサゾン;抗インターフェロン-γ、-β又はα抗体を含むサイトカイン又はサイトカインレセプターアンタゴニスト;抗腫瘍壊死因子-α抗体;抗腫瘍壊死因子-β抗体;抗インターロイキン-2抗体及び抗IL-2レセプター抗体;抗L3T4抗体;異種性抗リンパ球グロブリン;万能(pan)T抗体、好ましくは抗CD3又は抗CD4/CD4a抗体;LFA-3結合ドメインを含む可溶性ペプチド(1990年7月26日に公開された国際公開第90/08187号);ストレプトキナーゼ;TGF-β;ストレプトドルナーゼ;宿主からのRNA又はDNA;FK506;RS-61443;デオキシスペルグアリン(deoxyspergualin);ラパマイシン;T細胞レセプター(米国特許第5114721号);T細胞レセプターフラグメント(Offinerら, Science 251:430-432(1991);国際公開第90/11294号;及び国際公開第91/01133号);及びT細胞レセプター抗体(欧州特許第340109号)、例えばT10B9が含まれる。これらの抗原は、CD11a抗体と同時に又は別々の時間に投与され、当該分野で示されている量と同じか少ない投与量で使用される。好ましい補助免疫抑制剤は、実施する移植のタイプを含む、処置される疾患のタイプを含む多くの要因並びに患者の病歴に依存するが、一般的かつ全体的に好ましいものは、シクロスポリンA、グルココルチコステロイド(最も好ましくはプレドニゾン又はメチルプレドニゾロン)、OKT-3モノクローナル抗体、アザチオプリン、ブロモクリプチン、異種性抗リンパ球グロブリン、又はそれらの混合物から薬剤を選択することである。
治療の目的とされる「哺乳動物」とは、ヒト、家庭用又は畜産用動物、非ヒト霊長類、及び動物園、スポーツ又はペット用動物、例えばイヌ、ウマ、ネコ及びウシ等を含む、哺乳動物として分類されるあらゆる動物を指す。
ここで使用される「細胞障害剤」という用語は、細胞機能を抑制又は阻害するか、及び/又は細胞の崩壊を引き起こす物質を指す。この用語は放射性同位元素(例えばI131、I125、Y90及びRe186)、化学療法剤、毒素、例えば細菌、真菌、植物または動物由来の酵素活性毒又はそれらのフラグメントを含むことを意図している。
ここで使用される場合の「固相」とは、本発明の抗体が付着し得る非水性のマトリックスを意味する。ここで包含される固相の例には、ガラス(例えば調整穴あきガラス)、多糖類(例えばアガロース)、ポリアクリルアミド、ポリスチレン、ポリビニルアルコール及びシリコーンにより、部分的に又は全体的に形成されるものが含まれる。ある実施態様において、文脈に関連して、固相にはアッセイプレートのウェルが含まれ;他の場合は固相は精製カラムである(例えば、アフィニティークロマトグラフィーカラム)。またこの用語は、分離した粒子からなる不連続な固相、例えば米国特許第4275149号に記載されているものも含む。
ここで使用される場合の「IgE媒介性疾患」という用語は、免疫グロブリンIgEに対する過感受性及び/又は過剰産生により特徴付けられる状態又は疾患を意味する。特に、喘息、アレルギー性鼻炎及び結膜炎(枯草熱)、湿疹、蕁麻疹及び食物アレルギー等を含む、アナフィラキシー性感覚過敏症及びアトピー性アレルギーに関連した状態を含むと解釈すべきである。しかし、通常、蛇又は蜂に刺されるか、親の投薬に起因するアナフィラキシーショックといった深刻な病状もこの用語の範囲に含まれる。
また、本方法は、1以上のサブユニットからなるポリペプチドを含有し、ここで関心あるサブユニットをコードするDNAに作用可能に結合している転写調節エレメントを含有する複製可能な発現ベクターがファージコートタンパク質に融合される。
ここで使用される場合の「室温」又は「雰囲気温度」は23〜25℃であるべきである。
ここで使用される場合の「結合ポリペプチド」とは、標的分子にする選択可能な親和性で結合する任意のポリペプチドを意味する。好ましくはポリペプチドはタンパク質であり、最も好ましくは約100を越えるアミノ酸残基を含有するものである。典型的には、ポリペプチドはホルモン又は抗体又はそれらのフラグメントである。
ここで使用される場合の「標的分子」とは、抗体又はリガンドの生成が望まれているタンパク質には限らない任意の分子を意味する。しかし、好ましくは標的はタンパク質であり、最も好ましくは、標的は抗原である。しかし、レセプター、例えばホルモンレセプターが、特にこの用語の範囲内に含まれるべきである。
ここで明らかなIgE、変異体IgE分子及びキメラIgE分子の特定の部分に対応するペプチドのアミノ酸番号付けを含む、ここで使用される場合の、免疫グロブリンアミノ酸残基の番号付けは全て、Kabatら, Sequences of Proteins of Immunological Interest(National Institute of Health, Bethesda, MD 1987)の免疫グロブリンアミノ酸残基番号付けに従い行う。
I. 標的分子の親和性を改良する方法
A. 異性化可能なアスパルチル残基の同定
本発明の実施において、異性化する傾向のある異性化可能なアスパルチル残基の同定は、通常、当業者に公知の任意の技術によりなされる。例えば、Caciaら, Biochemistry 35, 1897-1903(1996)には、抗IgE抗体であるE-25(-Asp-Gly-残基を含有)を37℃で21日間インキュベートする方法が記載されている。異性化した-Asp-Gly-の同定は、未処理又はプロテアーゼで処理されたフラグメントの質量分析及びクロマトグラフィーによりなされる。また異性化はアスパラギニル残基で生じることが報告されているため(T.GeigerとS.Clarke, J. Biol. Chem. 262(2), 785-794(1987))、本発明では、系統的評価及びアスパラギニル残基を含有するポリペプチドの改良も、好ましく行われる。
レセプター親和性を最適化する多くの技術が、当業者に利用可能である。典型的には、これらの技術は、全て、関心のある部位で種々のアミノ酸残基を置換し、続いて変異ポリペプチドのレセプター親和性のスクリーニング分析することを含む。本発明での使用に好適な技術はファージディスプレイ(Hawkinsら, J. Mol Biol. 254:889-896(1992);Lowmanら, Biochemistry 30(45):10832-10838(1991))を使用する親和成熟である。簡単には、いくつかの高頻度可変領域部位(例えば6-7部位)を変異させて、各部位に全ての可能なアミノ酸置換を生じさせる。このようにして生成された抗体変異体を、繊維状ファージ粒子内にパッケージされるM13の遺伝子III産物への融合体として、該繊維状ファージ粒子から一価の形で表示する。種々の変異体が発現するファージを、結合選択のラウンドを通して循環し、続いて高親和性を示す変異体を単離し、配列決定する。
「ポリペプチド」選択サイクルの繰り返しを用いて、複数の選択サイクルを行うことで選択される多様なアミノ酸変化のファージミド選択により、更により高い親和結合性を有するものを選択する。リガンド又は抗体ポリペプチドにおけるアミノ酸選択の第1の領域を含むファージミド選択の第1ラウンドに続いて、リガンドのアミノ酸又は他の領域におけるファージミド選択の付加的ラウンドが行われる。ファージミド選択のサイクルは所望の親和性が達成されるまで繰り返される。この方法を例示するために、実施例4のファージディスプレイはサイクルで実施した。プールされたアフィニティ、異なったCDRからの変異の組合わせ等々。
よって、この発明は、標的分子、特に抗体に結合する任意のポリペプチドを対象とする。好ましいポリペプチドは医薬上有用なものである。抗体の例はセクションII.A.抗体の調製、(vi)多重特異性抗体(しかしながら、抗体が多重特異性である必要はないことに留意)において例示されている。好ましいポリペプチドには、ヒト成長ホルモン、デス-N-メチオニルヒト成長ホルモン、及びウシ成長ホルモン;甲状腺刺激ホルモン;チロキシン;インスリンA鎖、インスリンB鎖;プロリラクシン;マウスゴナドトロピン関連ペプチド;細菌タンパク質、例えばベータラクタマーゼ;組織因子タンパク質;インヒビン;アクチビン;血管内皮増殖因子;ホルモン又は増殖因子のレセプター;インテグリン;トロンボポイエチン;プロテインA又はD;リウマチ因子;神経増殖因子、例えばNGF-β;血小板誘導増殖因子;繊維芽細胞増殖因子、例えばaFGF及びbFGF;上皮増殖因子;形質転換増殖因子(TGF)、例えばTGF-α及びTGF-β;インスリン様成長因子-I及び-II;インスリン様成長因子結合タンパク質;CD-4;RNアーゼ;潜伏関連ペプチド;エリスロプロテイン;オステオインダクティブ因子;例えばHIVエンベロープの一部;免疫グロブリン;及び前掲のタンパク質の任意のフラグメントが含まれる。加えて、ポリペプチドの予め決められていた一又は複数のアミノ酸残基を置換、挿入又は欠失させて、例えば改良された生物学的特性を有する生成物を生成することもできる。さらに、これらポリペプチドのフラグメント、特に生物学的に活性なフラグメントも含まれる。この発明のさらに好ましいポリペプチドはヒト成長ホルモン、及び心房性ナトリウム利尿ペプチドA、B又はC、エンドトキシン、サブチリシン、トリプシン及び他のセリンプロテアーゼである。
所望のポリペプチド(例えば抗体)をコード化した遺伝子は、当該分野で公知の方法で得ることができる(一般的に、Sambrookら, Molecular Biology:A Laboratory Manual, Cold Spring Harbor, New York,(1989)を参照)。遺伝子の配列が既知であるならば、遺伝子をコード化したDNAは化学的に合成することができる(Merrifeild, J. Am. Chem, Soc. 85:2149(1963))。遺伝子の配列が未知か、過去に遺伝子が単離されていない場合は、cDNAライブラリ(所望のDNAが発現した適切な組織から得られたDNAから作製)から又は適切なゲノムDNAライブラリからクローニングすることができる。ついで、適当なプローブを使用して遺伝子を単離する。cDNAライブラリに対して、適切なプローブには、モノクローナル又はポリクローナル抗体(cDNAライブラリが発現ライブラリである場合)、オリゴヌクレオチド、及び相補的又は相同的cDNA又はそれらのフラグメントが含まれる。ゲノムDNAライブラリから関心ある遺伝子を単離するために使用されるプローブには、同一又は類似した遺伝子をコード化したcDNA又はそれらのフラグメント、相同的なゲノムDNA又はDNAフラグメント、及びオリゴヌクレオチドが含まれる。選択されたプローブを用いてのcDNA又はゲノムライブラリのスクリーニングは、前掲のSambrookらの10-12章に記載されている標準的な手順を使用して行われる。
遺伝子が単離された後、前掲のSambrookらにおいて一般的に記載されているようにして、それを適切なベクターに挿入し、増幅させる。
種々のタイプのベクターが入手可能であり、本発明の実施に使用することができるが、比較的容易に作成できるので、プラスミドベクターがここで使用するために好ましいベクターであり、容易に増幅することができる。一般的にプラスミドベクターは、プロモータ、シグナル配列、表現型選択遺伝子、複製開始部位、及び当業者に既知の他の必要な成分を含む種々のコンポーネントを含む。
原核生物ベクターに最も一般的に使用されるプロモータには、lacZプロモータ系、アルカリ性ホスファターゼphoAプロモータ、バクテリオファージλPLプロモータ(温度感受性プロモータ)、tacプロモータ(lacレプレッサにより制御されるハイブリッドtrp-lacプロモータ)、トリプトファンプロモータ、及びバクテリオファージT7プロモータが含まれる。プロモータの一般的記載については、前掲のSambrookらセクション17を参照されたい。これらは最も一般的に使用されるプロモータであるが、他の適切な微生物プロモータをさらに使用してもよい。
上述の成分並びに記載されたポリペプチドをコード化した遺伝子(遺伝子1)を含有する適切なベクターの作成物は、前掲のSambrookらにより記載されている標準的な組換えDNA法を使用して調製される。ベクターの形成のために組合せられる単離したDNAフラグメントを切断し、仕立て、所望のベクターが生成されるような特定の順序及び配向で互いにライゲーションさせる。
本発明のファージ親和性工程は、転写中に融合遺伝子が生成されるように、所望のポリペプチドを包含する遺伝子(遺伝子1)を第2の遺伝子(遺伝子2)に融合させることを意図している。遺伝子2は、典型的にはファージのコートタンパク質遺伝子であり、好ましくはファージM13遺伝子IIIコートタンパク質又はそれらのフラグメントである。遺伝子1と2の融合は、遺伝子1を含有するプラスミドの特定の部位に遺伝子2を挿入するか、又は遺伝子2を含有するプラスミドの特定の部位に遺伝子1を挿入することにより達成される。
プラスミドに遺伝子を挿入するには、プラスミドを遺伝子が挿入される正確な位置で切断する必要がある。よって、この位置は制限エンドヌクレアーゼ部位でなくてはならない(好ましくは、プラスミドが制限エンドヌクレアーゼ消化の間に一カ所で切断されるのみであるような独特の部位)。プラスミドは、上述のように消化され、ホスファターゼ化され、そして精製される。ついで遺伝子が、2つのDNAを共にライゲーションすることにより、この線形化プラスミドに挿入される。プラスミドの末端が挿入される遺伝子の末端と適合するならば、ライゲーションは完了する。同じ制限酵素がプラスミドの切断と挿入される遺伝子の単離の双方に使用されるならば、前掲のSambrookらのセクション1.68に記載されているように、DNAはリガーゼ、例えばバクテリオファージT4DNAリガーゼを使用し、ATP及びリガーゼバッファーの存在下で1−4時間、16℃で、混合物をインキュベートすることにより、直接ライゲーションさせることができる。末端が適合しないものであれば、バクテリオファージT4DNAポリメラーゼ又はDNAポリメラーゼIクレノウフラグメントを用い、末端を平滑にしなければならず、両者共、消化されるDNAの突出した1本鎖末端に充填するために4つのデオキシリボヌクレオチドトリホスファートが必要である。あるいは、末端はヌクレアーゼS1又は緑豆ヌクレアーゼ等のヌクレアーゼを使用して平滑にしてもよく、両者の機能はDNAの突出した1本鎖を切断することである。ついで、DNAは前掲のリガーゼを使用して再ライゲーションされる。いくつの場合においては、コード領域のリーディングフレームが変性しているため、挿入される遺伝子の末端を平滑にすることができない。この問題を克服するため、オリゴヌクレオチドリンカーを使用することができる。このリンカーは、挿入される遺伝子にプラスミドをつなぐ橋となる。これらのリンカーは、標準的な方法を使用し、2本鎖又は1本鎖DNAとして合成することができる。リンカーは挿入される遺伝子の末端と適合する一端を有している;リンカーはまず上述のライゲーション法を使用して遺伝子にライゲーションされる。リンカーの他端は、ライゲーションのためにプラスミドと適合するように設計される。リンカーの設計においては、挿入される遺伝子のリーディングフレーム又はプラスミドに含まれる遺伝子のリーディングフレームを破壊しないように留意することが必要である。いくつかの場合においては、リンカーがアミノ酸の一部をコードするか、一又は複数のアミノ酸をコード化するように、リンカーを設計する必要がある。
所望のポリペプチドをコード化した遺伝子1は、一又は複数の選択されたコドンで変更されてもよい。しかし、異性化可能なアスパルチル残基に相当するコドンは変えなければならない。変更とは、ポリペプチドをコード化した遺伝子における一又は複数のコドンの置換、欠失又は挿入であり、同じポリペプチドの未変更又は未変性配列に比べ、結果としてポリペプチドのアミノ酸配列が変化することと定義される。好ましくは、変更は、分子の一又は複数の領域において、任意の他のアミノ酸で、少なくとも1つのアミノ酸を置換することによりなされる。変更は当該技術で公知の種々の方法でなされ得る。限定するものではないが、これらの方法にはオリゴヌクレオチド媒介性変異誘発及びカセット変異誘発が含まれる。
オリゴヌクレオチド媒介性変異誘発は遺伝子1の置換、欠失及び挿入変異体を調製するのに好ましい方法である。この技術は、Zollerら, Nucleic Acids Res.10:6487-6504(1987)に記載されているように、当該分野においてよく知られている。簡単には、遺伝子1は所望の変異をコード化したオリゴヌクレオチドをDNAテンプレートにハイブリダイズすることにより変更され、ここでテンプレートは遺伝子1の未変性又は天然のDNA配列を含有するプラスミドの1本鎖形態をしている。ハイブリダイゼーション後、DNAポリメラーゼを使用して、テンプレートの第2相補的ストランド全体を合成し、これがオリゴヌクレオチドプライマーに挿入されて遺伝子1の選択された変更をコードする。
DNAテンプレートは、Vieraら, Meth. Enzymol. 153:3(1987)に記載された1本鎖ファージの原型又は複製を含有するベクター、又はバクテリオファージM13ベクター(一般的に入手可能なM13mp18及びM13mp19ベクターが適切である)から誘導されるベクターによってのみ作製される。よって、変異されることになるDNAは、1本鎖テンプレートを作製するために、これらのベクターに挿入されなくてはならない。1本鎖テンプレートの作製法は、前掲のSambrookらのセクション4.21-4.41に記載されている。
この方法も、遺伝子1の置換、欠失及び挿入変異体を調製するのに好ましい方法である。この方法は、Wellら, Gene 34:315(1985)に記載されたものに基づいている。出発物質は、変異される遺伝子である遺伝子1を含有するプラスミド(又は他のベクター)である。変異される遺伝子1のコドン(類)を同定する。同定された変異部位(類)の各側に独特の制限エンドヌクレアーゼ部位がなくてはならない。そのような制限部位が存在しないならば、それらを、上述のオリゴヌクレオチド媒介性変異誘発法を使用し、遺伝子1の適切な位置にそれらを導入して、作製することができる。制限部位をプラスミドに導入した後、プラスミドをこれらの部位で切断して、線形にする。所望の変異(類)を含有するが、制限部位の間のDNA配列をコード化した2本鎖オリゴヌクレオチドを、標準的な手順を使用して合成する。2つのストランドを別個に合成し、ついで標準的な技術を使用して一緒にハイブリダイズする。この2本鎖オリゴヌクレオチドはカセットと称される。このカセットは線形化プラスミドの末端と適合する3'及び5'末端を有するように設計されており、プラスミドに直接ライゲーションすることができる。このプラスミドは、今、遺伝子1の変異体DNA配列を含む。
他の実施態様において、この発明は一又は複数のサブユニットを含む所望のタンパク質の変異体の生産を対象としている。各サブユニットは典型的には別の遺伝子によりコードされる。各サブユニットをコード化する遺伝子は、当該分野において公知の方法(例えば、セクションIIを参照)で得ることができる。いくつかの例においては、セクションIIに記載された任意の方法から選択される別個の技術を使用し、種々のサブユニットをコード化した遺伝子を得ることが必要になる。
所望のマルチ-サブユニットタンパク質の変異体ファミリーを作成する場合、ベクターにおける各サブユニットをコード化したDNAは、各サブユニットにおける一又は複数の位置で変異し得る。マルチ-サブユニット抗体の変異体を作成する場合、変異誘発の好ましい部位は、軽鎖、重鎖の何れか、又は両方の鎖の相補性決定領域(CDR)に位置するアミノ酸残基をコード化したコドンに対応する。CDRは、通常、高頻度可変領域と称される。関心あるタンパク質の各サブユニットをコード化したDNAを変異誘発させる方法は、本質的に、上述のセクションVに記載されているようにして実施される。
標的分子、例えばレセプターは、天然源から単離されるか、当該分野において公知の手順による組換え法により調製される。例示すると、糖タンパク質ホルモンレセプターが、McFarlandら, Science 245:494-499(1989)に記載されている技術により調製され、大腸菌で発現する非グリコシル化形態が、Fuhら, J. Biol. Chem 265:3111-3115(1990)により記載されている。他のレセプターは標準的な方法で調製することができる。
精製標的分子を適切なマトリックス、例えばアガロースビーズ、アクリルアミド、ガラスビーズ、セルロース、種々のアクリル酸コポリマー、ヒドロキシアルキルメタクリラートゲル、ポリアクリル酸又はポリメタクリル酸コポリマー、ナイロン、中性及びイオン性のキャリア等に付着させる。標的タンパク質のマトリックスへの付着は、Methods in Enzymol. 44(1976)に記載されている方法、又は当該分野において公知の他の手段により達成される。
固定化された標的に対し高親和性を有する結合ファージミド粒子(「バインダー」)を、洗浄により、低親和性を有するもの(よって、標的に結合していない)から分離する。バインダーを、種々の方法で固定化された標的から解離させる。これらの方法には、種々の方法による固定化された標的からの競合解離が含まれる。これらの方法には、野生型リガンドを使用し、pH及び/又はイオン強度を変更する競合解離、及び当該分野において公知の方法が含まれる。
適切な宿主細胞を、バインダー及びヘルパーファージに感染させ、宿主細胞をファージミド粒子の増幅に適切な条件下で培養する。ついでファージミド粒子を収集し、標的分子に対する所望の親和性を有するバインダーが選択されるまで、選択工程を一又は複数回繰り返す。
出発抗体を当該技術において有用な技術を使用して調製することができる。抗体を作製する方法の例は、以下のセクションにより詳細に記載する。
抗体は関心ある抗原に対するものである。好ましくは抗原は、生物学的に重要なポリペプチドであり、病気又は疾患を被っている哺乳動物への抗体の投与によりその哺乳動物に治療的利益をもたらすことができる。しかし、非ポリペプチド抗原に対応する抗体(例えば、腫瘍随伴糖脂質抗原;米国特許第5091178号を参照)もまた考えられる。
種依存性であってもよい抗体を生成する技術、及びその技術に必要な変更点を、ここで次に詳しく述べる。
(i)抗原の調製
場合によっては他の分子に抱合されていてもよい可溶性抗原又はそのフラグメントを、抗体を産生するための免疫原として使用することができる。例えばレセプターのような膜貫通型分子では、これらのフラグメント(例えばレセプターの細胞外ドメイン)を免疫原として使用することができる。あるいは、膜貫通型分子を発現する細胞を免疫原として使用することができる。このような細胞は天然源(例えば癌株化細胞)から引き出すことができ、あるいは膜貫通型分子を発現する組換え技術により形質転換した細胞であってもよい。抗体を調製するために有用な他の抗原及びその型は当業者には明らかであろう。
ポリクローナル抗体は、好ましくは、関連する抗原とアジュバントを複数回皮下(sc)又は腹腔内(ip)注射することにより、非ヒト哺乳動物に産生される。免疫化されている種において免疫原性であるタンパク質、例えばスカシガイヘモシアニン、血清アルブミン、ウシサイログロブリン、又は大豆トリプシンインヒビターに、二重官能性又は誘導体形成剤、例えばマレイミドベンゾイルスルホスクシンイミドエステル(システイン残基により抱合)、N-ヒドロキシスクシンイミド(リジン残基により抱合)、グルタルアルデヒド、無水コハク酸、塩化チオニル、又はRとR1が異なったアルキル基であるR1N=C=NRを使用して、関連抗原を抱合させることが有用である。
選択された哺乳動物抗体は、通常、抗原に対し十分な強さの結合親和性を有する。例えば、抗体は、約1x10⁻⁷M、好ましくは約1x10⁻⁸M及び最も好ましくは約1x10⁻⁹Mを越えない結合親和性(Kd)値で、ヒト抗-IgE抗原と結合する。抗体の親和性は酵素結合免疫測定法(ELISA);及び競合アッセイ(例えば放射線面積検定法)により測定される。
ポリペプチド又は抗体の効力を測定するための好ましい方法は抗体の結合親和性の定量によるものであるが、他の実施態様においては、結合親和性に加えて、又はこれに変えて、一又は複数の抗体の生物学的特性を評価することが想定されている。このようなアッセイは、それらが抗体の治療における有効性に関して指標を提供する場合に、特に有用である。通常、必要ではないが、このようなアッセイで改良された特性を示す抗体は、結合親和性も高められている。
モノクローナル抗体は一つの抗原部位を認識する抗体である。それらの同一の特異性により、モノクローナル抗体は、種々の異なる抗原部位を認識する抗体を通常含む、ポリクローナル抗体よりも有用なものとされている。
モノクローナル抗体は、Kohlerら, Nature, 256:495 (1975)により最初に記載されたハイブリドーマ法を用いて作製でき、又は組換えDNA法(米国特許第4816567号)によって作製することができる。
このようにして調製されたハイブリドーマ細胞を、融合していない親の骨髄腫細胞の増殖または生存を阻害する一又は複数の物質を好ましくは含む適当な培地に蒔き、増殖させる。例えば、親の骨髄腫細胞が酵素ヒポキサンチングアニジンホスホリボシルトランスフェラーゼ(HGPRT又はHPRT)を欠失するならば、ハイブリドーマのための培地は、典型的には、HGPRT−欠失細胞の増殖を妨げる物質であるヒポキサンチン、アミノプテリン及びチミジンを含有するであろう(HAT培地)。
ハイブリドーマ細胞が生育している培地を、抗原に対するモノクローナル抗体の産生についてアッセイする。好ましくは、ハイブリドーマ細胞により産生されるモノクローナル抗体の結合特異性は、免疫沈降又はインビトロ結合検定、例えばラジオイムノアッセイ(RIA)又は酵素結合免疫吸着検定(ELISA)によって測定する。
サブクローンにより分泌されたモノクローナル抗体は、例えばプロテインA-セファロース、ヒドロキシアパタイトクロマトグラフィー、ゲル電気泳動、透析、又はアフィニティークロマトグラフィーのような常套的な免疫グロブリン精製法により、培地、腹水、又は血清から好適に分離される。
典型的には、このような非免疫グロブリンポリペプチドは、抗体の定常ドメインを置換し、又は抗体の1個の抗原結合部位の可変ドメインを置換して、抗原に対する特異性を有する1個の抗原結合部位、及び異なる抗原に対する特異性を有するもう一つの抗原結合部位を含むキメラ二価抗体を作り出す。
一度、種依存性抗体が同定され単離されると、それは異なる抗体又は変異体の作製に有用なものとなり、ここで一又は複数のアミノ酸残基は、哺乳動物抗体の一又は複数の高頻度可変領域で変更される。これに代えて、又は加えて、フレームワーク残基の一又は複数の変更(例えば置換)を、哺乳動物抗体に導入すると、結果として、ヒトIgEに対する抗体変異体の結合親和性が改良される。修飾されるフレームワーク領域の例には、抗原に直接、非共有的に結合するもの(Amitら, Science 233:747-753(1986));CDRのコンホメーションと相互作用する/これを変化させるもの(Chothiaら, J. Mo. Biol. 196:901-917(1987));及び/又はVL-VH界面に関与するものが含まれる(EP239401B1)。ある実施態様において、一又は複数のこのようなフレームワーク領域の残基が修飾されると、結果としてヒト抗原に対する抗体の結合親和性が高められる。例えば、約1〜約5のフレームワーク残基が本発明のこの実施態様において変更される。場合によっては、これは、臨床前試験で使用するのに適切な抗体変異体を産出するのに十分であり、そこで過剰可変領域においては何の変更もなされない。しかし、通常は、抗体変異体は付加的な過剰可変領域変更部位を含有する。
抗体変異体を作製するための有用な手順の一つは、「アラニンスキャニング変異誘発」として知られている(Cunningham,B.C. 及びWells,J.A. Science 244:1081-1085(1989);Cunningham,B.C. 及びWells,J.A. Proc. Natl. Acad. Sci. USA 84, 6434-6437(1991))。ここで、一又は複数の高頻度可変領域の残基(群)を、第2の哺乳動物種からの抗原とアミノ酸との相互作用に影響を及ぼすように、アラニン又はポリアラニンで置換する。ついで、置換に対し機能的敏感性を示すそれら高頻度可変領域の残基(群)を、置換部位において、又は該部位に対し、さらなる又は他の変異を導入することによりリファイニングする。よって、アミノ酸配列変異が導入される部位を予め測定しておくと、変異それ自体の性質を予め測定しておく必要がない。この方法で生成されたala-変異体を、ここに記載したようにして、それらの生物学的活性度でスクリーニングする。同様の置換がスキャニングアラニンにより付与される所望の特性に応じて、他のアミノ酸でも行われ得る。
典型的には、「好ましい置換」の項目名で、次の表Aに示すような保存的置換で始める。このような置換により生物学的活性(例えば結合親和性)が変化する結果となるのであれば、表Aの「例示的置換」に示されるか、又はさらにアミノ酸クラスに関して以下に記載される、さらなる変化を導入して、生成物をスクリーニングする。
アミノ酸残基の保存的置換
(1) 疎水性:ノルロイシン、met、ala、val、leu、ile;
(2) 中性で親水性:cys、ser、thr、asn、gln;
(3) 酸性:asp、glu;
(4) 塩基性:his、lys、arg;
(5) 鎖の配向に影響を及ぼす残基:gly、pro、及び
(6) 芳香性:trp、tyr、phe
非保存的置換は、これらのクラスの一つのメンバーを他のクラスと交換することを必要とする。
ある実施態様では、抗体変異体は、例えば約2ないし約15の高頻度可変領域置換から、置換された単一の高頻度可変領域の残基を含むのみである。
その配列中の定められた位置で異なる多くの(106)タンパク質変異体のライブラリを、各々が特定のタンパク質変異体をコードするDNAを含むバクテリオファージ粒子で作成することができる。親和精製のサイクル後、固定化抗原を使用して、個々のバクテリオファージクローンを単離し、その示されたタンパク質のアミノ酸配列をそのDNAから推測する。
ヒト化は、実質的により少ない無傷のヒト可変ドメインを非ヒト種由来の対応配列によって置換したキメラ抗体を作製する技術である。ヒト化抗体は、非ヒトである供給源から導入された一又は複数のアミノ酸残基を有する。これら非ヒトアミノ酸残基は、典型的には「移入」可変ドメインから得られる「移入」残基としばしば呼ばれる。ヒト化は本質的に齧歯動物の相補性決定領域(CDR)又はCDR配列をヒト抗体の該当する配列に置換することによりウィンターと共同研究者[Jonesほか, Nature, 321:522-525 (1986);Riechmannほか, Nature, 332:323-327 (1988);Verhoeyenほか, Science, 239:1534-1536 (1988)]の方法を使用して行うことができる。従って、このような「ヒト化」抗体は、実質的により少ない無傷のヒト可変ドメインが非ヒト種由来の対応する配列で置換されたキメラ抗体(米国特許第4816567号)である。本発明において実施されるところでは、ヒト化IgE抗体は、いくらかのCDR残基と場合によってはマウス抗体の類似部位からの残基によって置換されたいくらかの可能なFR残基を有する。
抗体変異体の生成に続いて、種依存性抗体に対するその分子の生物学的活性を測定する。上で見たように、これには結合親和性及び/又は他の抗体の生物学的活性の測定が含まれる。本発明の好ましい実施態様では、抗体変異体のパネルを上述のようにして調製し、第2の哺乳動物種からの抗原に対する結合親和性でスクリーニングする。この最初のスクリーニングで選択された一又は複数の抗体変異体を、場合によっては一又は複数のさらなる生物学的活性アッセイにかけ、結合親和性が高められた抗体変異体(類)が臨床前実験等に実際に有用であることを確かめる。好ましい実施態様において、抗体変異体は、種依存性抗体と類似した結合親和性を有する第1の哺乳動物種からの抗原に結合する能力を保持している。これは、抗ヒト抗体からの抗原の結合に関与する高頻度可変領域を変更することを避けることにより達成される。他の実施態様において、抗体変異体は第1の哺乳動物種とは有意に変更された結合親和性を有する(例えば、その抗原に対する結合親和性は好ましくはより良好であるが、種依存性抗体よりは悪い)。
抗体フラグメントを生産するために様々な技術が開発されている。伝統的には、これらのフラグメントは、無傷の抗体のタンパク分解性消化を介して誘導される(例えば、Morimotoら, Journal of Biochemical and Biophysical Methods 24:107-117 (1992)及びBrennanら, Science, 229:81 (1985)を参照されたい)。しかし、これらのフラグメントは現在は組換え宿主細胞により直接生産することができる。例えば、抗体フラグメントは上において検討した抗体ファージライブラリから分離することができる。別法として、F(ab')2-SHフラグメントは大腸菌から直接回収することができ、化学的に結合させてF(ab')2-SHフラグメントを形成することができる(Carterら, Bio/Technology 10:163-167 (1992))。他のアプローチ法では、F(ab')フラグメントを組換え宿主細胞培養から直接分離することができる。抗体フラグメントの生産のための他の方法は当業者には明らかであろう。他の実施態様では、選択抗体は単鎖Fvフラグメント(scFV)である(PCT特許出願国際公開第93/16185号)。
多重特異性抗体は、少なくとも二つの異なる抗原に対して特異的に結合するものである。このような分子は通常は二つの異なった抗原を結合させるのみであるが(すなわち、二重特異性抗体、BsAb)、三重特異性抗体のような更なる特異性を持つ抗体もここで使用される場合この表現に包含される。BsAbの例には、一方の腕が腫瘍細胞抗原に向けられ他方の腕が細胞毒性トリガー分子に向けられたもの、例えば抗FcγRI/抗CD15、抗p185HER2/FcγRIII(CD16)、抗CD3/抗悪性B細胞(1D10)、抗CD3/抗p185HER2、抗CD3/抗p97、抗CD3/抗腎臓細胞ガン腫、抗CD3/抗OVCAR-3、抗CD3/L-D1(抗大腸ガン腫)、抗CD3/抗メラニン細胞刺激ホルモン類似体、抗EGFレセプター/抗CD3、抗CD3/抗CAMA1、抗CD3/抗CD19、抗CD3/MoV18、抗神経細胞接着分子(NCAM)/抗CD3、抗葉酸塩結合タンパク質(FBP)/抗CD3、抗パン(pan)癌腫関連抗原(AMOC-31)/抗CD3;腫瘍抗原に特異的に結合する一つの腕と毒素に結合する一つの腕を持つBsAb、例えば、抗サポリン/抗Id-1、抗CD22/抗サポリン、抗CD7/抗サポリン、抗CD38/抗サポリン、抗CEA/抗リシンA鎖、抗CD22/抗サポリン、抗CD7/抗サポリン、抗CD38/抗サポリン、抗CEA/抗リシンA鎖、抗インターフェロンα(IFN-α)/抗ハイブリドーマイディオタイプ、抗CEA/抗ビンカアルカロイド;(マイトマイシンホスフェートのプロドラッグのマイトマイシンアルコールへの転換を触媒する)抗CD30/抗アルカリホスファターゼのような酵素活性化プロドラッグを転換するためのBsAb;抗フィブリン/抗組織プラスミノーゲンアクチベーター(tPA)、抗フィブリン/抗ウロキナーゼ型プラスミノーゲンアクチベーター(uPA)のような線維素溶解剤として使用することができるBsAb;抗低密度リポタンパク質(LDL)/抗Fcレセプター(例えばFcγRI、FcγRII又はFcγRIII)のような細胞表面レセプターへ免疫複合体をターゲティングするためのBsAb;感染性疾患の治療に使用されるBsAb、例えば抗CD3-抗単純ヘルペスウィルス(HSV)、抗T細胞レセプター:CD3複合体/抗インフルエンザ、抗FcγR/抗HIV;抗CEA/抗EOTUBE、抗CEA/抗DPTA、抗p185HER2/抗ハプテンのようなインビトロ又はインビボでの腫瘍検出のためのBsAb;ワクチンアジュバントとしてのBsAb;及び抗ウサギIgG/抗フェリチン、抗西洋ワサビペルオキシダーゼ(HRP)/抗ホルモン、抗ソマトスタチン/抗サブスタンスP、抗HRP/抗FITC、抗CEA/抗βガラクトシダーゼのような診断ツールとしてのBsAbが含まれる。三重特異性抗体の例には、抗CD3/抗CD4/抗CD37、抗CD3/抗CD5/抗CD37及び抗CD3/抗CD8/抗CD37が含まれる。二重特異性抗体は全長抗体又は抗体フラグメント(例えばF(ab')2二重特異性抗体)として調製することができる。
抗体フラグメントから二重特異性抗体を産生する技術もまた文献に記載されている。例えば、化学結合を使用して二重特異性抗体を調製することができる。Brennanら, Science, 229:81 (1985) は無傷の抗体をタンパク分解性に切断してF(ab')2フラグメントを産生する手順を記述している。これらのフラグメントは、ジチオール錯体形成剤亜砒酸ナトリウムの存在下で還元して近接ジチオールを安定化させ、分子間ジスルフィド形成を防止する。産生されたF(ab')フラグメントはついでチオニトロベンゾアート(TNB)誘導体に転換される。Fab'-TNB誘導体の一つをついでメルカプトエチルアミンでの還元によりFab'-チオールに再転換し、他のFab'-TNB誘導体の等モル量と混合して二重特異性抗体を形成する。作られた二重特異性抗体は酵素の選択的固定化用の薬剤として使用することができる。
組換え細胞培養から直接的に二重特異性抗体フラグメントを作成し分離する様々な方法もまた記述されている。例えば、二重特異性抗体はロイシンジッパーを使用して生産される。Kostelnyら, J.Immunol. 148(5):1547-1553 (1992)。Fos及びJunタンパク質からのロイシンジッパーペプチドを遺伝子融合により二つの異なった抗体のFab'部分に結合させる。抗体ホモダイマーをヒンジ領域で還元してモノマーを形成し、ついで再酸化して抗体ヘテロダイマーを形成する。この方法はまた抗体ホモダイマーの生産に対して使用することができる。Hollingerら, Proc.Natl.Acad.Sci. USA, 90:6444-6448 (1993)により記述された「ダイアボディ」技術は二重特異性抗体フラグメントを作成する別のメカニズムを提供した。フラグメントは、同一鎖上の2つのドメイン間の対形成を可能にするのに十分に短いリンカーにより軽鎖可変ドメイン(VL)に重鎖可変ドメイン(VH)を結合してなる。従って、一つのフラグメントのVH及びVLドメインは他のフラグメントの相補的VL及びVHドメインと強制的に対形成させられ、2つの抗原結合部位を形成する。単鎖Fv(sFv)ダイマーを使用する他の二重特異性抗体フラグメント製造方策もまた報告されている。Gruberら, J.Immunol. 152:5368 (1994)を参照されたい。
二価より多い抗体も考えられる。例えば、三重特異性抗体を調製することができる。Tuttら J.Immunol. 147:60(1991)。
本発明の抗体をエフェクター機能について改変し、抗体の、例えばIgEへの結合における効能を増強することが望ましい。例えば、システイン残基(群)をFc領域に導入して、この領域における鎖間ジスルイド結合の形成を許容する。このようにして産生されたホモダイマー抗体は改善されたインターナリゼーション能力及び/又は増加した補体媒介細胞死滅及び抗体依存性細胞障害活性(ADCC)を有しうる。Caronら, J.Exp.Med. 176:1191-1195 (1992)及びShopes,B. J.Immunol. 148:2918-2922 (1992)を参照されたい。別法として、二重Fc領域を有し、よって増強された補体溶解及びADCC能を有する抗体を設計することができる。Stevensonら, Anti-cancer Drug Design 3:219-230 (1989)を参照。
また本発明は、ここで記載され、細胞障害剤、例えば化学療法剤、毒素(例えば、細菌、真菌、植物又は動物由来の酵素活性毒素又はそれらのフラグメント)、又は放射性同位元素(すなわち、放射性コンジュゲート)に抱合された抗体を含有する免疫コンジュゲートに関する。
このような免疫コンジュゲートの産生に有用な化学療法剤は上述している。使用可能な酵素活性毒素及びそれらのフラグメントには、ジフテリアA鎖、ジフテリア毒素の非結合活性フラグメント、外毒素A鎖(シュードモナス・アエルギノサ(Pseudomonas aeruginosa)由来)、リシンA鎖、アブリンA鎖、モデシン(modeccin)A鎖、αサルシン(sarcin)、アロイライト・フォルジ(Aleurites fordii)タンパク質、ジアンチン(dianthin)タンパク質、フィトラカ・アメリカーナ(Phytolaca americana)タンパク質(PAPI、PAPII及びPAP-S)、モモルディカ・チャランティア(momordica charantia)インヒビター、クリン(curin)、クロチン、サパオナリア(sapaonaria)公定インヒビター、ゲロニン(gelonin)、マイトゲリン(mitogellin)、レストリクトシン(restrictocin)、フェノマイシン、エノマイシン及びトリコセセンス(tricothecenes)が含まれる。種々の放射性核種も放射性コンジュゲート抗体の生成に利用できる。具体例には212Bi、131I、131In、90Y及び186Reが含まれる。
ここで開示されている抗体変異体は、免疫リポソームとして調製することもできる。抗体を含むリポソームは、例えばEpsteinら, Proc. Natl. Acad. Sci. USA 82:3688(1985);Hwangら, Proc. Natl. Acad. Sci. USA 77:4030(1980);及び米国特許第4485045号及び同4544545号に記載されているような当該分野において公知の方法により調製される。循環時間を増大したリポソームは米国特許第5013556号に開示されている。
特に有用なリポソームは、ホスファチジルコリン、コレステロール及びPEG誘導体化ホスファチジルエタノールアミン(PEG-PE)を含有する脂質組成物を用いた逆相蒸発法により産生することができる。リポソームは孔の大きさが定められたフィルターを通して押し出され、所望の直径を有するリポソームが産出される。本発明の抗体のFab'フラグメントは、ジスルフィド交換反応を介して、Martinら, J. Biol. Chem. 257:286-288(1982)に記載されているようにしてリポソームにコンジュゲートすることができる。場合によっては、化学療法剤(例えばドキソルビシン)がリポソーム内に包含されている。Gabizonら, J. National Cancer Inst. 81(19):1484(1989)を参照。
また、本発明の抗体は、プロドラッグ(例えばペプチジル化学療法剤、国際公開第81/01145号を参照)を活性抗癌剤に転化させるプロドラッグ活性酵素に抗体をコンジュゲートさせることにより、ADEPTにおいて使用することができる。例えば国際公開第88/07378号及び米国特許第4975278号を参照。
ADEPTに有用な免疫コンジュゲートの酵素成分には、より活性な細胞障害形態に転化するようにプロドラッグに作用可能な任意の酵素が含まれる。
限定するものではないが、この発明の方法に対して有用な酵素には、ホスファート含有プロドラッグを遊離の薬剤に転化するのに有用なアルカリ性ホスファターゼ;スルファート含有プロドラッグを遊離の薬剤に転化するのに有用なアリールスルファターゼ;非毒性5-フルオロシトシンを抗癌剤に転化するのに有用なシトシンデアミナーゼ;例えばペプチド含有プロドラッグを遊離の薬剤に転化するのに有用なセラチアプロテアーゼ、サーモリシン、サブチリシン、カルボキシペプチダーゼ及びカテプシン(例えば、カテプシンB及びL)のようなプロテアーゼ;D-アミノ酸置換基を含有するプロドラッグの転化に有用なD-アラニルカルボキシルペプチダーゼ;グリコシル化プロドラッグを遊離の薬剤に転化するのに有用なノイラミニダーゼ及びβガラクトシダーゼのような炭水化物切断酵素;βラクタムで誘導体化された薬剤を遊離の薬剤に転化させるのに有用なβラクタマーゼ;及びそれぞれフェノキシルアセチル又はフェニルアセチル基でそれらのアミン性窒素において誘導体化された薬剤を遊離の薬剤に転化するのに有用なペニシリンVアミダーゼ又はペニシリンGアミダーゼのようなペニシリンアミダーゼが含まれる。あるいは、当該分野でアブザイムとしても知られている酵素活性を持つ抗体を用いて本発明のプロドラッグを遊離の活性薬物に転換することができる(Massey, Nature 328: 457-458 (1987))。抗体-アブザイムコンジュゲートは、腫瘍細胞集団へのアブザイムの送達についてここで記載しているようにして調製することができる。
この発明の酵素は、当該分野においてよく知られている技術、例えば上において検討したヘテロ二官能性架橋試薬を使用することにより、抗体変異体に共有的に結合させることができる。あるいは、本発明の酵素の少なくとも機能的に活性な部位に結合した、本発明の抗体の少なくとも抗原結合領域を含有する融合タンパク質を、当該分野においてよく知られている組換えDNA技術を使用して作成することができる(Neubergerら, Nature 312:604-608(1984))。
本発明のある実施態様においては、例えば腫瘍浸透性を増大させるために無傷の抗体よりも抗体フラグメントを使用することが望ましい。この場合、その血清半減期を増大させるために抗体フラグメントを改変することが望ましい。これは、例えば、抗体フラグメントにサルベージレセプター結合エピトープを導入することにより(例えば、抗体フラグメント中の適当な領域の突然変異により、あるいはついで抗体フラグメントの何れかの末端又は中央に、例えばDNA又はペプチド合成により、融合されるペプチドタグ内にエピトープを導入することにより)、達成できる。
サルベージレセプター結合エピトープは、好ましくは、Fcドメインの一又は二つのループからの一又は複数のアミノ酸残基が抗体フラグメントの類似位置に移される領域を構成する。更により好ましくは、Fcドメインの一又は二つのループの3又はそれ以上の残基が移される。なお更に好ましくは、エピトープはFc領域(例えばIgGの)のCH2ドメインから取上げられ、抗体のCH1、CH3、又はVH領域、あるいは一以上のそのような領域に移される。別法として、エピトープをFc領域のCH2ドメインから取上げ、抗体フラグメントのCL領域又はVL領域、又は両方に移す。
抗体の共有結合的修飾は本発明の範囲内に含まれる。それらは、化学合成により、又は適用可能ならば抗体の酵素的もしくは化学的開裂により製造し得る。他のタイプの抗体の共有結合的修飾は、抗体の標的とするアミノ酸残基を、選択した側鎖又はNもしくはC末端残基と反応できる有機の誘導体化剤と反応させることにより、分子中に導入される。
システイニル残基は最も一般的にはα−ハロアセタート(及び対応するアミン)、例えば、クロロ酢酸又はクロロアセトアミドと反応し、カルボキシメチル又はカルボキシアミドメチル誘導体を生じる。システイニル残基も又ブロモトリフルオロアセトン、α-ブロモ-β-(5-イミドゾイル)プロピオン酸、クロロアセチルホスファート、 N-アルキルマレイミド、3-ニトロ-2-ピリジルジスルフィド、メチル-2-ピリジルジスルフィド、p-クロロ水銀ベンゾアート、2-クロロ水銀-4-ニトロフェノール、又はクロロ-7-ニトロベンゾ-2-オキサ-1,3-ジアゾールとの反応によって誘導体化される。
ヒスチジル残基はpH5.5-7.0でジエチルピロカルボナートとの反応によって誘導体化されるが、これは、この試薬がヒスチジル側鎖に対して相対的に特異的であるからである。パラ-ブロモフェナシルブロミドも又有用である;この反応は、好ましくはpH6.0で0.1Mのカコジル酸ナトリウム中で行われる。
アルギニル残基は一つあるいは幾つかの従来の試薬との反応によって修飾され、とりわけ、フェニルグリオキサール、2,3-ブタンジオン、1,2-シクロヘキサンジオン及びニンヒドリンがある。アルギニン残基の誘導体化は、グアニジン官能基の高いpKaのために反応がアルカリ性条件下で行われることを必要とする。更に、これらの試薬はリジンの基並びにアルギニンのエプシロン-アミノ基と反応しうる。
チロシル残基の特異的修飾は、芳香族ジアゾニウム化合物又はテトラニトロメタンとの反応によるチロシル残基内へのスペクトル標識の導入に特に興味を持ってなされる。最も一般的には、N-アセチルイミジゾールとテトラニトロメタンを使用して、それぞれがO-アセチルチロシル種と3-ニトロ誘導体を形成する。チロシル残基はラジオイムノアッセイ用の標識化タンパクを調製するために125I又は131Iを用いてヨウ素化される。
グルタミニル及びアスパラギニル残基はしばしば各々対応するグルタミル及びアスパルチル残基にそれぞれ脱アミド化される。これらの残基は中性又は塩基性条件下で脱アミド化される。これらの残基の脱アミド化型は本発明の範囲内に入る。
その他の修飾は、プロリンとリジンのヒドロキシル化、セリル又はスレオニル残基のヒドロキシル基のホスホリル化、リジン、アルギニン、及びヒスチジン側鎖のαアミノ基のメチル化(T.E. Creighton, Proteins: Structure and Molecular Properties, W.H. Freeman & Co., San Francisco, PP.79-86 (1983))、N末端アミンのアセチル化及び任意のC末端カルボキシル基のアミド化を含む。
抗体の共有結合的修飾の他のタイプは、米国特許番第4640835号;第4496689号;第4301144号;第4670417号;第4791192号又は第4179337号に記載されているように、抗体を、種々の非タンパク性ポリマーの一つ、例えばポリエチレングリコール、ポリプロピレングリコール、又はポリオキシアルキレンに結合させることを含む。
本発明は、ここで開示されている抗体変異体をコードしている核酸を分離し、核酸を含有するベクター及び宿主細胞、及び抗体変異体を生成するための技術を提供する。
抗体変異体を組換え生成するために、それをコードする核酸を単離し、更なるクローニング(DNAの増幅)又は発現のために複製可能なベクター内に挿入する。モノクローナル抗体をコードしているDNAは直ぐに分離され、通常の手順を使用して(例えば、抗体変異体の重鎖と軽鎖をコードしている遺伝子に特異的に結合可能なオリゴヌクレオチドプローブを使用して)配列決定される。多くのベクターが利用できる。限定されるものではないが、ベクター成分には一般に次のものの一又は複数が含まれる:シグナル配列、複製開始点、一又は複数のマーカー遺伝子、エンハンサーエレメント、プロモータ、及び転写終結配列。
本発明の抗体変異体は組換え手法によって生産されるだけではなく、シグナル配列あるいは成熟タンパク質あるいはポリペプチドのN末端に特異的切断部位を有する他のポリペプチドである異種性ポリペプチドとの融合ペプチドとしても生産される。好ましく選択された異種シグナル配列は宿主細胞によって認識され加工される(すなわち、シグナルペプチダーゼによって切断される)ものである。原核生物宿主細胞は天然抗体シグナル配列を認識し加工せず、シグナル配列は、例えばアルカ性ホスファターゼ、ペニシリナーゼ、lppあるいは熱安定なエンテロトキシンIIリーダーの群から選択される原核生物シグナル配列により置換される。酵母の分泌に関しては、天然シグナル配列は、酵母インベルターゼリーダー、アルファ因子リーダー(酵母菌属(Saccharomyces)及びクルイベロマイシス(Kluyveromycesα因子リーダーを含む)、又は酸フォスフォターゼリーダー、白体(C.albicans)グルコアミラーゼリーダー又は国際特許第WO90/13646号に記載されているシグナルにより置換され得る。哺乳動物細胞の発現においては、哺乳動物シグナル配列、並びにウイルス分泌リーダー、例えば単純ヘルペスgDシグナルが有用である。
このような前駆体領域のDNAにおいては、抗体変異体をコードするDNAにリーディングフレームが結合される。
発現とクローニングベクターは共に一又は複数の選択された宿主細胞においてベクターの複製を可能にする核酸配列を含む。一般に、この配列はクローニングベクターにおいて、宿主染色体DNAとは独立にベクターが複製することを可能にするものであり、複製開始点又は自律的複製配列を含む。このような配列は多くの細菌、酵母及びウイルスに対してよく知られている。プラスミドpBR322に由来する複製開始点は大部分のグラム陰性細菌に好適であり、2μプラスミド開始点は酵母に適しており、様々なウイルス開始点(SV40、ポリオーマ、アデノウイルス、VSV又はBPV)は哺乳動物細胞におけるクローニングベクターに有用である。一般には、哺乳動物の発現ベクターには複製開始点成分は不要である(SV40開始点が典型的には初期プロモータを有しているため用いられる)。
発現及びクローニングベクターは、選択的マーカーとも称される選択遺伝子を含む。典型的な選択遺伝子は、(a)アンピシリン、ネオマイシン、メトトレキサートあるいはテトラサイクリンのような抗生物質あるいは他の毒素に耐性を与え、(b)栄養要求性欠陥を補い、(c)例えばバシリ(Bacilli)に対する遺伝子コードD-アラニンラセマーゼのような、複合培地から得られない重要な栄養素を供給する、タンパク質をコードする。
選択技術の一例においては、宿主細胞の成長を抑止する薬品が用いられる。異種性遺伝子で首尾よく形質転換した細胞は、抗薬品性を付与し、選択摂生を生存するタンパク質を生産する。このような優性選択の例としては、ネオマイシン、ミコフェノール酸又はハイグロマイシンが使用される。
哺乳動物の細胞に適切な選択的マーカーの他の例は、DHFR、チミジンキナーゼ、金属結合性タンパク質-I及びII、例えば霊長類の金属結合性タンパク質、アデノシンディアミナーゼ、オルニチンデカルボキシラーゼを捕捉するのに適切な細胞を同定することができるものである。
あるいは、抗体をコードするDNA配列、野生型DHFRタンパク質、及びアミノグリコシド-3'-ホスホトランスフェラーゼ(APH)のような他の選択的マーカーで形質転換あるいは同時形質転換した宿主細胞(特に、内在性DHFRを含む野生型宿主)は、カナマイシン、ネオマイシンあるいはG418のようなアミノグリコシド抗生物質のような選択可能マーカーの選択剤を有する培地における細胞成長により選択することができる(米国特許第4965199号)。
発現及びクローニングベクターは、通常、宿主生物によって認識され、抗体核酸に作動可能に結びついているプロモータを含む。原核生物での使用に好適なプロモータは、phoAプロモータ、β‐ラクタマーゼ及びラクトースプロモータ系、アルカリ性ホスファターゼ、トリプトファン(trp)プロモータ系、及びハイブリッドプロモータ、例えばtacプロモータを含む。しかし、他の既知の細菌プロモータも好適である。細菌系で使用するプロモータもまた抗体をコードするDNAと作動可能に結合したシャイン・ダルガーノ(S.D.)配列を有する。
酵母宿主と共に用いて好適なプロモータ配列の例としては、3-ホスホグリセラートキナーゼ、又は他の糖分解酵素、例えばエノラーゼ、グリセルアルデヒド-3-リン酸デヒドロゲナーゼ、ヘキソキナーゼ、ピルビン酸デカルボキシラーゼ、ホスホフルクトキナーゼ、グルコース-6-リン酸イソメラーゼ、3-ホスホグリセレートムターゼ、ピルビン酸キナーゼ、トリオセリン酸イソメラーゼ、ホスホグルコースイソメラーゼ、及びグルコキナーゼが含まれる。
SV40ウィルスの初期及び後期プロモータは、SV40ウイルスの複製起点をさらに含むSV40制限フラグメントとして簡便に得られる。ヒトサイトメガロウィルスの最初期プロモータは、HindIIIE制限フラグメントとして簡便に得られる。ベクターとしてウシ乳頭腫ウィルスを用いて哺乳動物宿主でDNAを発現する系が、米国特許第4419446号に開示されている。この系の修飾は米国特許第4601978号に開示されている。また、ヒトβインターフェロンcDNAは単純ヘルペスウイルス由来のチミジンキナーゼプロモータの調節下で発現している。また、ラウス肉腫ウィルスの長い末端反復配列もプロモータとして使用することができる。
より高等の真核生物による本発明の抗体をコードしているDNAの転写は、ベクター中にエンハンサー配列を挿入することによって増強され得る。哺乳動物の遺伝子由来の多くのエンハンサー配列が知られている(グロビン、エラスターゼ、アルブミン、α-フェトプロテイン及びインスリン)。しかしながら、典型的には、真核細胞ウィルス由来のエンハンサーが用いられるであろう。例としては、複製起点の後期側のSV40エンハンサー(bp100-270)、サイトメガロウィルス初期プロモータエンハンサー、複製起点の後期側のポリオーマエンハンサー及びアデノウィルスエンハンサーが含まれる。真核生物のプロモータの活性化のための増強要素については、Yaniv, Nature, 297:17-18 (1982)もまた参照のこと。エンハンサーは、抗体コード配列の5'又は3'位でベクター中にスプライスされ得るが、好ましくはプロモータから5'位に位置している。
真核生物宿主細胞(酵母、真菌、昆虫、植物、動物、ヒト、又は他の多細胞生物由来の有核細胞)に用いられる発現ベクターは、また転写の終止及びmRNAの安定化に必要な配列を含む。このような配列は、真核生物又はウィルスのDNA又はcDNAの5'、時には3'の非翻訳領域から一般に取得できる。これらの領域は、抗体をコードしているmRNAの非翻訳部分にポリアデニル化フラグメントとして転写されるヌクレオチドセグメントを含む。ある有用な転写終止成分は、ウシ成長ホルモンのポリアデニル化部位である。国際公開第94/11026号及びここで開示されている発現ベクターを参照。
ここでのベクター中でのクローニング又はDNAの発現に適した宿主細胞は、前掲の原核生物、酵母、又は高等真核細胞である。この目的に対して好適な原核生物は、グラム陰性またはグラム陽性生物等の真性細菌、例えば、エシェリチア等の腸内細菌科、例えば大腸菌、エンテロバクター、エルウィニア、クレブシエラ、プロテウス、サルモネラ、例えばサルモネラ・チフィムリウム、セラチア属、例えばセラチア・マルセスキャンス、及びシゲラ、並びにバシラス、例えばB.サチリス及びB.リチエニホルミス(例えば1989年4月12日公開のDD266710に開示されたB.リチエニホルミス41P)、シュードモナス、例えばP.エールギノーサ、及びストレプトマイセスを含む。1つの好ましい大腸菌クローニング宿主は、大腸菌294(ATCC 31,443)であるが、大腸菌B、大腸菌X1776(ATCC 31,537)、及び大腸菌W3110(ATCC 27,325)も適している。これらの例は、限定的でなく、例示的である。
宿主細胞は、抗体生産のために前掲の本発明の発現又はクローニングベクターで形質転換され、プロモーターを誘発し、形質転換体を選出し、又は所望の配列をコードする遺伝子を増幅するために適切に修正した通常の栄養培地で培養される。
この発明の抗体変異体を製造するのに用いる宿主細胞は、様々な培地中で培養し得る。HamのF10(シグマ)、最小必須培地(MEM、シグマ)、RPMI-1640(シグマ)、及びダルベッコの改変イーグル培地(DMEM、シグマ)等の商業的に入手し得る培地が、該宿主細胞を培養するのに適している。また、Hamら, Meth. Enzymol. 58:44(1979)、Barnesら, Anal. Biochem. 102:255(1980);米国特許第4767704号、第4657866号、第4927762号;第4560655号又は第5122469号;国際特許第87/00195号又は再発行米国特許第30985号に記載されたいずれの培地も、該宿主細胞用の培地として使用し得る。これらの培地のいずれも、必要に応じて、ホルモンおよび/または他の増殖因子(例えばインスリン、トランスフェリン又は上皮増殖因子)、塩(例えばX-クロリドで、Xはナトリウム、カルシウム、マグネシウム;リン酸塩)、緩衝液(例えばHEPES)、ヌクレオシド(例えばアデノシンおよびチミジン)、抗生物質(例えばゲンタマイシン(登録商標)剤)、微量元素(最終濃度がマイクロモルの範囲で通常存在する無機化合物と定義される)、およびグルコースまたは等価なエネルギー源を補い得る。いずれの他の必要な添加物も、当業者に知られているであろう適当な濃度で含めてもよい。温度、pH等の培養条件は、発現用に選択された宿主細胞について以前に用いられた条件であり、当業者には明らかであろう。
組換え技術を使用する場合、抗体変異体は、細胞膜周辺腔において細胞内に生産することができ、又は培地に直接分泌させることができる。抗体変異体が細胞内に生産されるときは、第一工程として、粒状細片を、例えば遠心分離又は限外濾過により、宿主細胞であれ溶解細胞であれ除去する。Carterら, Bio/Technology 10:163-167(1992)には、大腸菌の細胞膜周辺腔に分泌される抗体を単離する手順が記載されている。簡単には、細胞ペーストを、酢酸ナトリウム(pH3.5)、EDTA、及びフェニルメチルスルホニルフロリド(PMSF)の存在下で、30分以上かけて溶かす。細胞屑は遠心分離により除去可能である。抗体変異体が培地に分泌される場合は、そのような発現系からの上清を、商業的に入手可能なタンパク質濃縮フィルター、例えばアミコン又はミリポアペリコン限外濾過ユニットを使用して一般に最初に濃縮される。PMSFのようなプロテアーゼインヒビターを、タンパク分解を阻害するために先の工程の何れかで含めてもよく、また抗生物質を外来性汚染物の成長を防ぐために含めてもよい。
予備の精製工程に続いて、関心ある抗体変異体と汚染物質を含有する混合物を、約2.5-4.5のpHで溶離用バッファーを使用し、好ましくは低い塩分濃度(例えば、約0-0.25Mの塩)で低pH疎水性相互作用クロマトグラフィーにかけてもよい。
ポリペプチド又は抗体に治療用調製物は、当該技術において典型的に使用されている任意の「製薬的に許容可能な」キャリア、賦形剤又は安定剤(全て賦形剤とと称される)と、所望の精製度を有するポリペプチドとを混合することにより、凍結乾燥された調製物又は水性溶液として保管されるように調製される。例えば、緩衝剤、安定剤、防腐剤、等張剤(isotonifiers)、非イオン性の洗浄剤、酸化防止剤及び他の様々な添加剤である(Remington's Pharmaceutical Sciences, 16th edition, A. Osol, Ed., (1980))。このような添加剤は、受容者に対して、使用される用量及び濃度で毒性のないものでなければならない。
緩衝剤は、生理学的条件に近い範囲内にpHを保持する助けをする。それらは、好ましくは約2mM〜約50mMの範囲の濃度で存在している。本発明において適切に使用される緩衝剤には、有機酸と無機酸の両方、及びそれらの塩類、例えばクエン酸バッファー(例えば、クエン酸一ナトリウム-クエン酸二ナトリウムの混合物、クエン酸-クエン酸三ナトリウムの混合物、クエン酸-クエン酸一ナトリウムの混合物)、コハク酸バッファー(例えば、コハク酸-コハク酸一ナトリウムの混合物、コハク酸-水酸化ナトリウムの混合物、コハク酸-コハク酸二ナトリウムの混合物等)、酒石酸バッファー(例えば、酒石酸-酒石酸ナトリウムの混合物、酒石酸-酒石酸カリウムの混合物、酒石酸-水酸化ナトリウムの混合物等)、フマル酸バッファー(例えば、フマル酸-フマル酸一ナトリウムの混合物等)、フマル酸バッファー(例えば、フマル酸-フマル酸一ナトリウムの混合物、フマル酸-フマル酸二ナトリウムの混合物、フマル酸一ナトリウム-フマル酸二ナトリウムの混合物等)、グルコン酸バッファー(例えば、グルコン酸-グルコン酸ナトリウムの混合物、グルコン酸-水酸化ナトリウムの混合物、グルコン酸-グルコン酸カリウムの混合物等)、シュウ酸バッファー(シュウ酸-シュウ酸ナトリウムの混合物、シュウ酸-水酸化ナトリウムの混合物、シュウ酸-シュウ酸カリウムの混合物等)、乳酸バッファー(例えば、乳酸-乳酸ナトリウムの混合物、乳酸-水酸化ナトリウムの混合物、乳酸-乳酸カリウムの混合物等)及び酢酸バッファー(例えば、酢酸-酢酸ナトリウムの混合物、酢酸-水酸化ナトリウムの混合物等)が含まれる。さらに、リン酸バッファー、ヒスチジンバッファー及びトリメチルアミン塩、例えばTrisも挙げられる。
防腐剤は微生物の成長を妨げるために、0.2%-1%(w/v)の範囲の量で添加される。本発明における使用において好適な防腐剤には、フェノール、ベンジルアルコール、メタ-クレゾール、メチルパラベン、プロピルパラベン、オクタデシルジメチルベンジルアンモニウムクロリド、ベンザルコニウムハロゲン化物(例えば塩化物、臭化物、ヨウ化物)、塩化ヘキサメソニウム(hexamethonium)、アルキルパラベン類、例えばメチル又はプロピルパラベン、カテコール、レゾルシノール、シクロヘキサノール及び3-ペンタノールが含まれる。
時として「安定剤」として既知の等張剤は、本発明の液体組成物を、確実に等浸透圧とするために存在し、多価糖アルコール、好ましくは三価(trihydric)又は高級糖アルコール、例えばグリセリン、エリトリトール、アラビトール、キシリトール、ソルビトール及びマンニトールが含まれる。多価アルコールは、他の成分の量と比較して、0.1重量%〜25重量%、好ましくは1重量%〜5重量%の量で存在可能である。
非イオン性の界面活性剤又は洗浄剤(「湿潤剤」としても知られている)は、治療剤を安定化、並びに振動誘発性凝集から治療用タンパク質の保護を補助するために存在し、またタンパク質の変性を引き起こすことなく、表面応力の剪断に調製物をさらすことができる。好適な非イオン性界面活性剤には、ポリソルベート(20、80等)、ポロキサマー(184、188等)、プルロニックRポリオール、ポリオキシエチレンソルビタンモノエーテル(トウィーン(TweenR)-20、トウィーン-80等)が含まれる。非イオン性界面活性剤は約0.05mg/ml〜10mg/ml、好ましくは約0.07mg/ml〜約0.2mg/mlの範囲で存在する。
付加的な種々の賦形剤には、増量剤(例えばデンプン)、キレート剤(例えばEDTA)、酸化防止剤(例えばアスコルビン酸、メチオニン、ビタミンE)及び共溶媒が含まれる。
ここで、調製物は、処置において特に必要な一又は複数の活性化合物、好ましくは互いに悪影響を及ぼさない相補的活性を有するものを含有し得る。例えば、免疫抑制剤をさらに提供することが望まれている。このような分子は、好適には、意図した目的に有効な量で組合せて存在する。
インビボ投与用に使用される調製物は滅菌されなくてはならない。このことは、例えば滅菌フィルター膜を通すことで容易に達成される。
徐放性調製物を調製してもよい。徐放性調製物の適切な例には、抗体変異体質を含む固体疎水性重合体の半透性マトリックスが含まれ、マトリックスはフィルム状又はマイクロカプセル状等の成型物品の形態である。徐放性マトリックスの例には、ポリエステル、ヒドロゲル(例えばポリ(2-ヒドロキシエチル-メタクリラート)、又はポリ(ビニルアルコール)、ポリ乳酸(米国特許第3773919号)、L-グルタミン酸とL-グルタミン酸エチルのコポリマー、非分解性エチレン-酢酸ビニル、分解性乳酸-グリコール酸コポリマー、例えばLUPRON DEPOTTM(乳酸-グリコール酸コポリマー及び酢酸ロイプロリドからなる注入可能なミクロスフェア)、及びポリ-D-(-)-3-ヒドロキシ酪酸が含まれる。エチレン−酢酸ビニルや乳酸−グリコール酸等のポリマーは100日以上分子を放出できるが、特定のヒドロゲルはより短い時間タンパク質を放出する。カプセル化抗体は、長時間体内に残存すると、37℃で水分に曝されることで、変性又は凝集し、生物学的活性の喪失や免疫原生の変化のおそれがある。かかるメカニズムによって安定性を得るための合理的な処置が考えられる。例えば、凝集機構がチオ−ジスルフィド交換による分子間S-S結合であることが分かったら、スルフヒドリル残基を変更し、酸性溶液から凍結乾燥し、水分量を調整し、適当な添加物を使用し、特定の重合体マトリックス組成物を開発することで安定性を達成することができる。
好ましい実施態様においては、治療用ポリペプチド、抗体又はそれらのフラグメントは、皮下注射により投与される。各用量は、体重1kg当り約0.5μg〜約50μg、好ましくは体重1kg当り約3μg〜約30μgの範囲である。皮下投与の投与スケジュールは、病気の種類、病気の程度、及び患者の治療剤に対する敏感度を含む臨床要因の数に応じて1週間から1日に1度のように変えることができる。
本発明の抗体変異体は親和精製剤として使用することができる。この目的において、抗体を固相、例えばセファデックス(Sephadex)樹脂又は濾紙に、当該技術においてよく知られた方法を使用して固定する。固定化抗体変異体を、精製される抗原を含有するサンプルと接触させ、支持体を適切な溶媒で洗浄することにより、精製され、固体化抗体変異体の結合した抗原を除き、試料内の全ての物質が実質的に除去される。最後に、支持体を他の適切な溶媒、例えばpH5.0グリシンバッファーで洗浄し、抗体変異体から抗原を放出させる。
変異体抗体は、診断アッセイ、例えば特定の細胞における興味ある抗原の発現の検出においても有用である。
診断用途において、抗体変異体は典型的には検出可能部分で標識される。多くの標識が利用でき、一般的に次のカテゴリーに分類することができる:
(b)蛍光標識、例えば希土類キレート(ユーロピウムキレート)又はフルオレイセン及びその誘導体、ローダミン及びその誘導体、ダンシル、リサミン(Lissamine)、フィコエリトリン及びテキサス・レッド(Texas Red)が利用される。蛍光ラベルは、上掲のCurrent Protocol in Immunologyに開示されている技術を使用し、抗体変異体に抱合される。蛍光は蛍光計を使用して定量することができる。
(c)種々の酵素-基質ラベルが利用でき、米国特許第4275149号においてはこれらのいくつかが再考されている。酵素は一般的に、発色性基質の化学的変化を触媒し、種々の技術を用いて測定することができる。例えば、酵素は基質の色調変化を触媒し、これは分光光度的に測定することができる。また、酵素は基質の蛍光又は化学ルミネセンスを変化させることもできる。蛍光の変化を定量する技術は前掲している。化学ルミネセンス基質は化学反応により電気的に励起し、次に測定可能な(例えば化学ルミネセンス計)光を発するか、又は蛍光アクセプターにエネルギーを付与する。酵素ラベルの例には、ルシフェラーゼ(例えば蛍のルシフェラーゼと細菌のルシフェラーゼ;米国特許第4737456号)、ルシフェリン、2,3-ジヒドロフタラジンジオン、マラートデヒドロゲナーゼ、ウレアーゼ、ペルオキシダーゼ、例えば西洋ワサビペルオキシダーゼ(HRPO)、アルカリ性ホスファターゼ、βガラクトシダーゼ、グルコアミラーゼ、リソチーム、糖類オキシダーゼ(例えばグルコースオキシダーゼ、ガラクトースオキシダーゼ、及びグルコース-6-ホスファート-デヒドロゲナーゼ)、複素環オキシダーゼ(例えばウリカーゼ及びキサンチンオキシダーゼ)、ラクトペルオキシダーゼ、マイクロペルオキシダーゼ等が含まれる。
(i)基質としてのヒドロゲンペルオキシダーゼを西洋ワサビペルオキシダーゼ(HRPO)、ここでヒドロゲンペルオキシダーゼは染料先駆物質を酸化する(例えば、オルトフェニレンジアミン(OPD)又は3,3',5,5'-テトラメチル-ベンジジン-ヒドロクロリド(TMB));
(ii)発色性基質としてのp-ニトロフェニルホスファートとアルカリ性ホスファターゼ(AP);及び
(iii)β-D-ガラクトシダーゼと発色性基質(例えばp-ニトロフェニル-β-D-ガラクトシダーゼ)又は蛍光性基質-4-メチルウンベリフェリル-β-D-ガラクトシダーゼ、
が含まれる。
多くの他の酵素-基質組合せ物が当業者により利用される。これらの一般的再考として、米国特許第4275149号及び同4318980号を参照のこと。
時折、ラベルは抗体変異体と間接的に抱合される。当業者であれば、これを達成するための種々の技術を知っているであろう。例えば、抗体変異体はビオチン、と抱合可能であり、また前掲のラベルの3つの広義のカテゴリーの任意のものはアビジンと結合可能であり、またその逆もある。ビオチンはアビジンに選択的に結合し、よってこのような間接的な方法で、ラベルと抗体変異体は抱合可能である。別に、抗体変異体とラベルとの間接的抱合を達成させるには、抗体変異体を少量のハプテン(例えばジグロキシン(digloxin))と抱合させ、前掲の異なる種類のラベルの一つと抗-ハプテン抗体変異体(例えば、抗-ジグロキシン抗体)を抱合させる。このようにして、ラベルと抗体変異体との間接的抱合が達成される。
本発明の他の好ましい実施態様においては、抗体変異体をラベルする必要はなく、よって、その存在は抗体変異体に結合しているラベル化抗体を使用して検出され得る。
本発明の抗体は、任意の既知のアッセイ法、例えば競合結合アッセイ、直接及び間接サンドイッチアッセイ、及び免疫沈降アッセイに使用してもよい。Zola, Monoclonal Antibodies:A Manual of Techniques, pp.147-158(CRC Press,Inc. 1987)。
サンドイッチアッセイでは、検出される互いに異なる免疫原部分、又はエピトープ、又はタンパク質に結合可能な2つの抗体が使用される。サンドイッチアッセイにおいて、分析されるテスト用サンプルは、固体支持体に固定化された第1の抗体に結合し、その後、第2の抗体がテスト用サンプルに結合し、よって不溶性の3部位複合体が形成される。例えば、米国特許第4376110号を参照。第2の抗体は検出可能な部分で、それ自身がラベルされてもよく(直接サンドイッチアッセイ)、又は検出可能な部分でラベルされた抗免疫グロブリン抗体を使用して測定してもよい(間接サンドイッチアッセイ)。例えば、一方の種類のサンドイッチアッセイはELISAアッセイであり、この場合、検出可能な部分は酵素である。
免疫組織化学において、腫瘍サンプルは新鮮なものであるか凍結されていてもよく、パラフィンに埋設されていてもよく、防腐剤、例えばホルマリンで固定されていてもよい。
また抗体はin vivo診断アッセイに使用してもよい。一般的に抗体変異体は、腫瘍は免疫シンチグラフィーを使用して局在化されるように放射性ヌクレオチド(例えば、111In、99Tc、14C、131I、3H、32P又は35S)で標識される。
簡便な方法として、本発明のポリペプチド又は抗体はキット、すなわち診断アッセイを実施するための使用説明書と、予め定められた量の試薬を組合せて包装したものを提供する。抗体変異体は酵素でラベルされている場合は、キットは基質と酵素に必要な補助因子を含有する(例えば、検出可能な発色団又は蛍光団を提供する基質先駆物質)。加えて、他の添加剤、例えば安定剤、バッファー(例えばブロックバッファー又は溶菌バッファー)等も含まれる。種々の試薬の相対量は広範囲で変えることができ、アッセイの感度を実質的に最適にするような試薬溶液中の濃度が提供される。特に、試薬は、通常は凍結乾燥され、溶解時に適切な濃度を有する試薬溶液を提供する賦形剤を含む乾燥パウダーとして提供される。
F.ポリペプチド又は抗体のインビボにおける用途
本発明のポリペプチド又は抗体は哺乳動物を治療するための使用を意図している。一つの実施態様において、抗体は、例えば臨床前データを得るために、非ヒト哺乳動物に投与される。治療される例示的な非ヒト哺乳動物には、非ヒト霊長類、イヌ、ネコ、齧歯動物及び臨床前実験が行われる他の哺乳動物が含まれる。このような哺乳動物は、抗体で治療される病気用の動物モデルとして確立されているか、又は関心ある抗体の毒性を調査するために使用される。これら各実施態様において、用量エスカレーション研究は哺乳動物において行われ得る。
病気を予防又は治療するために、抗体又はポリペプチドの適切な用量は、抗体変異体が予防又は治療目的、先の治療用のいずれのために投与されても、治療される病気の種類、もちろん病気の程度、患者の病歴及び抗体変異体の反応性、及び教育研究病院医の判断に依存する。抗ヒトIgE抗体は1回又はそれ以上の連続した処置において、適切に患者に投与される。
抗体変異体組成物は、良好な医術と整合的方法において調製され、適量にされ、投与される。このような関係において考慮すべき要因には、特に治療される疾患、中でも治療される哺乳動物、個々の患者の臨床的状態、疾患の原因、薬剤を付与する部位、投与方法、投与スケジュール、及び医師に公知の他の要因が含まれる。投与される抗体変異体の「治療に有効な量」は、このような考えにより決定され、病気又は疾患の予防、改善又は治療に必要な最小量とされるであろう。抗体変異は必須ではないが、場合によっては、現在問題の疾患の予防又は治療に使用される一又は複数の薬剤と共に調製される。このような他の薬剤の有効量は、調製物中に存在する抗ヒトIgEの量、疾患又は処置の種類、及び前掲した他の要因に依存する。これらは、一般的に、前掲における使用と同様の用量及び投与経路、又はこれまで使用されていた用量の約1〜99%で使用される。
本発明の他の好ましい実施態様において、前掲の疾患の治療に有用な物質を含有する製造品が提供される。製造品には容器とラベルも含まれる。適切な容器には、例えばボトル、バイアル、シリンジ及び試験管が含まれる。容器はガラス又はプラスチックのような様々な材料で形成することができる。容器は病状の治療に有効な活性剤を含む組成物を収容しており、滅菌した出入口を有している(例えば、容器は皮下注射針により貫通可能なストッパーを具備する静脈溶液用のバック又はバイアルであってよい)。組成物中の活性剤は抗体変異体である。容器上又は容器に伴うラベルには、組成物が選択された病状の治療に使用されることが示されている。製造品は、製薬的に許容可能なバッファー、例えばリン酸緩衝食塩水、リンガー液及びデキストロース溶液を収容する第2の容器をさらに具備する。さらに、他のバッファー、希釈剤、フィルター、針、シリンジ、および使用指示書を伴うパッケージ挿入物を含む、市販及び使用者の観点から望ましい他の材料を更に含んでいてもよい。
以下の実施例は発明を例証するものであって、限定するものではない。
IgEに対するモノクローナル抗体の調製
IgEのFcεR1への結合をブロックする能力を持つ8つのモノクローナル抗体(MAE10−MAE17)を調製した。IgEに対するモノクローナル抗体は、単離した抗-IgE抗体(Genentech MAE1)上のアフィニティークロマトグラフィを用いてU266B1(ATCC TIB 196)細胞の上清から調製した。MAE12について、5匹の6週齢のBALB/c雌マウスを、それらの足蹠でリビス(Ribi's)アジュバント中の10μgの精製したIgEで免疫化した。最初の免疫化の1及び3週後に、同様の方法で注射を続けた。最後の注射から3日後に、鼡径部及び膝窩のリンパ腺を取り出してプールし、その組織をスチールガーゼを通すことにより単一細胞懸濁物を作製した。細胞は、50%w/vのポリエチレングリコール4000を含有する高グルコース(DMEM)において4:1の比率でマウス骨髄腫P3X63-Ag8.653(ATCC CRL 1580)と融合させた。MEA14、MAE15及びMAE13については同様の方法で免疫化したが、MAE13のみは1回の注射当たり30μgのIgEを用い、IgEフラグメント315-347(Kabat)はプレフュージョンブースト(prefusion boost)でアッセイし;MAE10及びMAE11については、注射は100μgの2回投与及び50μgの最終ブーストで皮下で行い、融合には脾臓細胞を用いた。
融合の15日後、上清を、酵素結合免疫吸着検定法(ELISA)を用いてヒトIgEに特異的な抗体の存在について試験した。ELISAは以下のように実施し、全てのインキュベーションは室温で行った。試験プレート(Nunc Immunoplate)を、50mM炭酸ナトリウム緩衝液、pH9.6中の1μg/mlのラット抗-マウスIgG(Boehringer Mannheim, #605-500)で2時間コートし、次いで、リン酸緩衝塩水中の0.5%のウシ血清アルブミンで30分間ブロックし、次いで、0.05%のTween20を含むPBS(PBST)で4回洗浄した。試験上清を添加し、2時間振とうしながらインキュベートし、次いで、PBSTで4回洗浄した。ヒトIgE(U266細胞から上記のように精製)を0.5μg/mlで添加し、次いで、振とうしながら1時間インキュベートした後、PBSTで4回洗浄した。ヤギ抗-ヒトIgE(Kirkegarrd & Perry Labs, #14-10-04, 0.5 mg/ml)と複合させたセイヨウワサビペルオキシダーゼを1:2500希釈で添加して1時間インキュベートし、次いでPBSTで4回洗浄した。10mgのo-フェニレンジアミンジヒドロクロライド(Sigma, #P8287)を含む溶液10μl/ウェル及び25mlリン酸クエン酸緩衝液、pH5.0、中の30%過酸化水素10μlを添加し、15分間インキュベートすることによりプレートを現像した。反応は、2.5M硫酸を100μl/ウェル添加することにより停止させた。データは、自動化ELISAプレートリーダーにおいて、490nmの吸収でプレートを読むことにより得た。MAE12については、365の上清を試験し、100がヒトIgEに特異的であった。他の抗体についてスクリーニングすると、IgE特異的な類似の配列が得られた。ここに記載したMAE17及びMAE14を除く全てのモノクローナル抗体はIgG1アイソタイプであり、MAE17はIgG2b、MAE14はIgG2aであった。
各IgE特異的抗体を、細胞ベース及びプレートアッセイにおいてさらに試験し、IgEのFcεRIへの結合を阻害するようにIgEに結合し、FCEH-結合IgEには結合できない抗体を選択した。これらのアッセイの結果を、以下の表1及び表2に示す。
マウス抗HuIgEmAbの特性の概要
マウス抗HuIgEの概要(続き)
1.マウス抗-ヒトIgEモノクローナルの分析のためのFACSベースアッセイ。CHO3D10(FcεRIアルファ+)上のIgEGに結合するマウス抗-ヒトIgEモノクローナルのスクリーニング。
a.サンプル当たり5×10⁵細胞のCHO3D10細胞(FceRIアルファ鎖安定トランスフェクタント、Hakimiら, J. Biol. Chem. 25: 22079)を、100μlのFACS緩衝液(0.1%BSA、PBS中の10mMアジ化ナトリウム、pH7.4)中の10μg/mlのU266IgE標品(ロット番号13068-46)とともに4℃で30分間インキュベートした後、FACS緩衝液で1回洗浄した。結合するIgEの量は、IgE担持細胞細胞のアリコートを50μg/mlのポリクローナルFITC複合ウサギ抗ヒトIgG(Accurate Chem Co. AXL-475F, ロット番号16)とともに4℃で30分間インキュベートし、FACS緩衝液で3回洗浄して測定した。
b.IgE担持細胞を、100μlのマウス抗ヒトIgEハイブリドーマ上清(マウスIgG濃度は1から20μg/mlの範囲)とともに、4℃で30分間インキュベートし、次いでFACS緩衝液で1回洗浄した。結合のポジティブコントロールとして10μg/mlのGenentechモノクローナル抗ヒトIgE(MaE1)を用いた。ネガティブコントロールとして10μg/mlのIgEを認識しないGenentechモノクローナル(MAD6P)を用いた。
c.CHO細胞上のヒトIgEへのモノクローナル結合を、細胞を20μg/mlのFITC複合、アフィニティ精製したF(ab’)2ヤギ抗-マウスIgG(Organon Teknica, #10711-0081)とともに4℃で30分間インキュベートし、FACS緩衝液で3回洗浄することにより検出した。細胞に、2μg/mlヨウ化プロピジウム(Sigma, #P4170)を含む400μlの緩衝液を添加して脂肪細胞を染色した。
d.細胞を、Becton Dickinson FACSCANフローサイトメーターで分析した。前方光散乱及び90度側方散乱ゲートを、細胞の均一集団分析用に設定した。ヨウ化プロピジウムで染色した死亡細胞は分析から除外した。CHO3D10細胞上のIgEに結合しないハイブリドーマ上清を、さらなるスクリーニングの候補と考えた。
a.U266B1細胞(膜IgE+)を、15%ヘッド不活性ウシ胎児血清(Hyclone, #A-1111-L)、ペニシリン、ストレプトマイシン(100単位/ml)、及びL-グルタミン(2mM)を付加した塩基性媒質中で培養した。
b.細胞(5×10⁵/アリコート)を、10、5、1、0.5及び0.1μg/mlを含むマウス抗-ヒトIgEモノクローナルを含む100μlのFACS緩衝液中で、96ウェルの丸底ミクロタイタープレート中、氷上で30分間インキュベートし、FACS緩衝液で2回洗浄した。GenentechモノクローナルMAE1を、ポジティブコントロールとして用いた。
c.細胞を、50μg/ml(1:20ストック)FITC複合F(ab’)2アフィニティ精製ヤギ抗-マウスIgE(Organon Teknika, #1711-0084)を含む100μlのFACS緩衝液中、氷上で30分間インキュベートし、FACS緩衝液で3回洗浄した。細胞を、ヨウ化プロピジウムを2μg/mlで含有する400μlFACS緩衝液に添加して死亡細胞を染色した。
a.IM9ヒトB骨髄腫細胞(ATCC CCL159, Ann. N.Y. Acad. Sci. 190: 221-234 (1972))を、10%の熱不活性化したウシ胎児血清、ペニシリン、ストレプトマイシン(100単位/ml)及びL-グルタミン(2mM)とともに、GIF塩基性媒質中に維持した。
b.細胞(5×10⁵/アリコート)をU266IgE標準を2μg/mlで含むFACS緩衝液100μl中、96ウェルミクロタイタープレートにおいて4℃で30分間インキュベートし、FACS緩衝液で2回洗浄した。コントロールとして、細胞を緩衝液のみ、またはヒトIgG1(Behring Diagnostics, cat.no.400112, ロット番号801024)2μg/mlを含む緩衝液でインキュベートした。
c.次いで、細胞を0.1から10μg/mlのマウス抗-ヒトIgEモノクローナルとともに、氷上で30分間インキュベートした。GenentechモノクローナルMAE1をポジティブコントロールとして用いた。
d.細胞を、次いで、FITC複合F(ab’)2ヤギ抗マウスIgGを50μg/ml(Organon Teknika, #1711-0084)を含むFACS緩衝液100μl中、4℃で30分間インキュベートし、FACS緩衝液で3回洗浄した。
e.次いで、細胞に、ヨウ化プロピジウムを2μg/mlで含む緩衝液400μlを添加して死亡細胞を染色した。
f.細胞を、Becton Dickinson FACSCANフローサイトメーターで分析した。前方光散乱及び90度側方散乱ゲートを、細胞の均一集団分析用に設定した。ヨウ化プロピジウムで染色した死亡細胞は分析から除外した。FITC陽性細胞(IgE結合)を、FITCウサギ抗-ヒトIgEのみで染色した細胞に対して分析した。
g.各実験におけるIM9細胞表面上のCD23のレベルを決定するためのポジティブコントロールとして、細胞のアリコートを10μg/mlのBecton DickinsonマウスモノクローナルLeu 20(抗-CD23)で、4℃で30分間染色し、2回洗浄した。次いで、細胞をFITC複合F(ab’)2アフィニティ精製ヤギ抗-マウスIgG50μg/mlとともにインキュベートした。
40nMのFITCラベルしたIgEの、Bリンパ芽球細胞IM-9上に表現された低親和性IgEレセプター(CD23またはFcεRI)への結合を、FACSCANフローサイトメーターでのフローサイロメトリーで分析した。抗体のFITC IgE結合に対する影響は、FITC IgEを、マウス抗-ヒト抗体を0.1から10μg/mlキメラとともに、0.1%BSA及び10mMのアジ化ナトリウムを含むpH7.4のPBS中、37℃で30分間プレインキュベートし、その複合体を5×105細胞で、4℃で30分間インキュベートすることにより実験した。次いで、細胞を3回洗浄し、平均チャンネル蛍光を457nMで測定した。
7.IgEインビトロアッセイプロトコール
a.末梢血液単核細胞を、平常ドナーから分離した。
b.細胞をPBSで強く洗浄して血小板をできる限り除去した。
c.単核細胞を数え、媒質中に1×10⁶細胞/mlで再懸濁した。媒質は、DMEMとペニシリン及びストレプトマイシン、15%ウマ血清、IL-2(25U/ml)及びIL-4(20ng/ml)の混合物とした。
d.抗体を、0、5及び8日目に、適切な濃度で添加した。
e.培地を、24ウェルのFalcon組織培養プレートで14日間インキュベートした。
f.14日目に、上清を除去し、IgE特異的ELISAプロトコールによりIgE濃度をアッセイした。
8.ヒトIgEに対するマウスmAbの親和性定数(kd)を平衡結合スキャッチャード分析で決定した。
a.IgE(ND及びPSアロタイプ)をクロラミンT法によってヨウ素化し、RIA緩衝液:PBS、0.5%ウシ血清アルブミン(Sigma, #A-7888)、0.05%Tween20(Sigma, #P-1379)、0.01%チメルソール(Sigma, #T-5125)、pH7.4中のPD10sephadex G25カラム(Parmacia, #17-0851-01)で、フリーの125INaから分離した。約78−95%のカラム後の計数は、50%トリクロロ酢酸で沈殿させ、ヨウ素化IgE製剤の特異的活性は、70%の計数効率を仮定して1.6から13μCi/μgの範囲であった。
b.固定濃度(約5×10⁴cpm)の125Iを、12×75mmポリプロピレン試験管内の0.1mlRIA緩衝液中の最終容量が種々の濃度の非ラベルIgE(1から200nM)に添加した。0.1mlのRIA緩衝液中のマウス抗-ヒトIgEmAb(最終濃度20mM)を添加して、最終アッセイ用容量0.2mlとした。
c.サンプルを、連続攪拌しながら25℃で16−18時間インキュベートした。
d.結合した及びフリーの125I IgEを、RIA緩衝液中のCNBr活性化Sepharose 4B(Pharmacia, #17-0430-01)に結合したアフィニティ精製ヤギ抗-マウスIgG(Boehringer Mannheim, #605-208)及びキャリアプロテインA Sepharose(Repligen, #IPA 300)の混合物0.3mlを添加することにより分離し、強く攪拌しながら25℃で1から2時間インキュベートした。次いでRIA緩衝液(1ml)を添加し、試験管を400xgで5分間遠心分離した。次いでサンプルを数えて全計数を決定した。上清を微小吸引ピペットで吸引し、サンプルを再計数し、フリーに対する結合した数を計算した。
e.NIHのP.Munsonによって書かれたリガンドプログラムに基づくフォートランプログラム(scanplot)を用いてスキャッチャード分析を実施した。スキャッチャードプロットは、全体としてRodbardタイプ回帰分析の関数として結合させた質量作用等式フィッティングを用いた。
ヒト化MaE11の調製
序文:
以下の実施例は、ヒト化MaE11の種々の調製を記載し、残基は、部位指向性突然変異を介して修飾されて12の抗IgE MaE11変異体[F(ab)1−12]に達している。F(ab)12の残基は、1992年8月14日に出願されたPCT/US92/06860に記載した高能力の抗IgE抗体であるrhuMaE25またはE25を生成するテンプレートとして用いた。
方法:
図1に示すマウス抗-ヒトIgE mAb MaE11を、pUC119ベースのプラスミド、pAK2(Carterら, (1992), Proc. Natl. Aca. Sci. USA 89: 4285)中のヒトk-サブグループI軽鎖及びヒトサブグループIII重鎖(VH-CH1)を含むデオキシウリジン含有テンプレートから、部位指向性突然変異(Kunkel, T.A., (1985), Proc, Natl. Acad. Sci. USA 82: 488)により修飾し、変異体F(ab)-1を得た。F(ab)2はF(ab)-1テンプレートから構築し、他の全てのヒト化F(ab)変異体は、F(ab)-2のテンプレートから構築した。プラスミドは、二本鎖及び一本鎖DNAの調製のために、E.coli株JM101中にトランスフォームした(Messing, J. (1979), Recomb. DNA Tech. Bull. 2: 43; Ausubleら, Current Protocols in Molecular Biology, Unit 1 (1997))。軽及び重鎖残基の両方を、ジデオキシヌクレオチド法を用いて完全に配列させた。軽及び重鎖をコードするDNAは、次いで、E.coliのF(ab)発現プラスミド、pAK19(Carterら, (1992), Biotechnology 10: 163)の誘導体中にサブクローンした。この誘導体は、F(ab’)2フラグメントで内部重鎖ジスルフィドを形成するヒンジシテイン(hinge cytein)を欠く。F(ab)フラグメントは、全長IgG抗体とは異なり、ほ乳類細胞培養技術ではなくE.coli発現を用いることができるので、かなり多数の変異体の分析を促進した。これら個々の変異体は、1993年3月4日に発行された出願WO93/04173 に記載されている。最適な変異体が決定されれば、それは続いて、全長ヒトIgG1をコードするプラスミドにサブクローンされる(以下参照)。
F(ab)緩衝液を、Centricon-30(Amicon)を用いてPBS中に交換し、最終容量0.5mlに濃縮した。各F(ab)フラグメントのSDS-PAGEゲルを、精度を確認するために流出させた。F(ab)濃度を、0.1%の1.0のε280を用いて決定した。この同じサンプルについて、消衰係数を、精製したF(ab)-2及びA280のアミノ酸分析からのタンパク質濃度を用いて決定した。
ヒト化MaE11の全長ヒトIgG1バージョンの一般化のために、重鎖及び軽鎖を、既に述べたpRKプラスミド(Gorman, C.M.ら, (1990), DNA Protein Eng. Tech. 2: 3)に別々にサブクローンした。(望まれる配列変化に依存して)適当な重鎖及び軽鎖プラスミドを、293(Graham, F.L.ら (1977), J. Gen. Virol. 36: 59)として知られるアデノウィルス形質転換したヒト胚腎臓細胞系に、高効率法(Grahamら, 上記、及びGorman, C.M., Science 221: 551)を用いたコトランスフェクトした。媒質を血清無しに変換し、5日まで毎日収穫した。抗体をプールした上清から、タンパク質A−Sepharose CL-4B(Pharmacia)を用いて精製した。溶離した抗体をG25ゲル濾過によりPBSに緩衝液交換し、Centriprep-30又はCentricon-100(Millipore)を用いて限外濾過し、4℃で貯蔵した。抗体濃度は、全IgG−結合ELISAを用いて決定した。結果を表4に記載する。
96−ウェルのアッセイプレート(Nunc)を、コーティング緩衝液中(50mMの炭酸、重炭酸塩、pH9.6)の0.05mlのFcεRIα−鎖IgGキメラレセプターで、4−8℃で12時間コートした。ウェルを吸引し、250μlのブロッキング緩衝液(PBS、1%BSA、pH7.2)を添加し、4℃で1時間インキュベートした。別のアッセイプレートにおいて、サンプル及び参照用マウスMaE11を、200〜0.001μg/mlまでアッセイ緩衝液(0.5%BSA及び0.05%Tween20、PBS、pH7.2)での1:4希釈液で滴定し、10ng/mlのビオチニル化IgE(O-Shannessy, D.J.ら (1984), Immunol. Let. 8: 273)を等容量添加した後、プレートを25℃で2−3時間インキュベートした。FcεRI-コートしたウェルをPBS及び0.05%のTween20(Sigma)で3回洗浄し、サンプルウェルから50μlを移して、攪拌しながら25℃で30分間インキュベートした。ストレプトアビディン-HRP(500μg/ml、Sigma)の溶液、アッセイ緩衝液中の1:5000希釈液を50μl/ウェルで添加した後、プレートを攪拌しながら15分間インキュベートし、上述のように洗浄した。50μl/ウェルのミクロウェルペルオキシダーゼ基質(Kirkgaard & Perry Laboratories)を添加し、30分間発色させた。等量の1NのHClを添加することにより反応を停止し、450nmで吸収を測定した。ブロッキング抗体の濃度対パーセント阻害をプロットし、カレイダグラフ(Kaleidagraph)データ分析アプリケーション(Synergy Software)を使用して非線形の4パラメータのカーブフィッティングで、50%阻害の濃度を計算した。結果を表3に報告する。
抗体がFITC-複合(Goding, J.W.ら (1976), J. Immunol. Methods 13: 215)IgEのCHO3D細胞(Hakimi, J.ら (1990), J. Biol. Chem. 265: 22079)上に表現された高親和性FcεRIレセプターのα鎖に結合を阻害する能力を、フローサイトメトリーで測定した。FITC-複合IgE(40mM)を抗体(0.3−1.0×10⁻⁶M)とともに37℃で30分間、FACS緩衝液(PBS、0.1%BSA、及び10mMアジ化ナトリウム、pH7.4)中でプレインキュベートした。複合体を、次いで、5×10⁵のCHO CD10細胞とともに4℃で30分間インキュベートした。細胞をFACS緩衝液で3回洗浄し、475nmにおける平均チャンネル蛍光をFACScanフローサイトメータ(Becton Dickinson)で測定した。MaE1、IgEのFcεRIα鎖への結合をブロックしないマウス抗-ヒトIgEmAbをポジティブコントロールとして用い、MOPC21(Cappel)、IgEを認識しないマウスモノクローナルをネガティブコントロールとして用いた。結果を表3に記載する。
ヒトIgEへの抗体結合を、10μg/mlヒトIgEとともに、CHO3D10細胞上に表現されたFcεRIのα-サブユニットと4℃で30分間結合させた。細胞を3回洗浄した後、濃度を変化させながら、マウス抗-ヒトIgEmAbのMaE1またはMaE11またはヒト化mAb変異体12[F(ab)12]とともに30分間インキュベートした。MOPC21(マウスIgG1)をマウスmAbsのコントロールとして用い、ヒト化4D5mAb(Carterら, Proc. Natl. Acad. Sci. USA 89: 4285 (1992), ヒトIgG1)をF(ab)12のコントロールとして用いた。マウスmAbの結合はFITC-複合F(ab’)2ヤギ抗-マウスIgE(10μg/ml)で検出した。ヒト化mAb結合はFITC-複合F(ab’)2ヤギ抗-ヒトIgG(50μg/ml)で検出したが、これらは、IgEとの交差反応性を最小にするため、IgEカラムから精製したものである。結果を図4に記載する。
図1のF(ab)VL及びVHドメインの配列を用い、マウスMaE11VL−VHドメインのコンピュータグラフィクスモデルを構築した。このモデルは、引き続き、何れのフレームワーク残基をF(ab)-2の生成をもたらすヒト化抗体に組み込むべき化を決定するのに用いた。また、ヒト化変異体のモデルは、マウスのフレームワーク残基の正しい選択を正当化するために構築された。モデルの構築は、Carterら (1992), Proc. Natl. Acad. Sci. USA 89: 4285; Eigenbrot, C.ら (1993), J. Mol Biol. 229: 969に記載されたように実施した。
ヒト化MaE11抗体の設計:
ヒト化抗体のこの実験は、ヒトのコンセンサス配列を用いた。これは、対象とするマウスIgに最も近いヒト配列を用いていた他のヒト化技術とは対照的である。Shearman, C.W.ら(1991), J. Immunol. 147: 4366; Kettleborough, C.A.ら (1991), Protein Eng. 4: 773; Tempest, P.R.ら (1991), Biotechnology 9: 266; Co, M.S.ら(1991), Proc. Natl. Acad. Sci. USA 88: 2869; Routledge, E.G. (1991), Eur. J. Immunol. 21: 2717。このヒトコンセンサス配列は、Kabatら(1991), Sequences of Proteins of Immunological Interest, 5 ed., National Institute of Health, Bethesda, MDにおいて決定されたヒトVHサブグループIII及びVLκサブグループIに基づくフレームワークからなる。F(ab)-1は、上記のKabatにより決定された6つのCDRを、ヒトIgG1フレームワークにグラフトすることにより生成した。全てのフレームワーク残基は、ヒトとして維持した。この変異体は、直鎖”CDRスワップ”と記載するのが最も良いであろう。F(ab)-1は、検出できる、IgEのレセプターへの結合の阻害を示さなかった(表3)。このような”CDRスワップ”変異体が、その抗原に結合しないことは既に報告されている。Carterら、上記;Tempestら、上記。表3にはF(ab)-1の正確な配列は記載されていないが、この配列が、対応するヒト残基に対する置換MaE11マウスKabatCDR残基(括弧内に示す)によって推測することができることに注意すべきである。図1は、右手及び左手の括弧によってKabatCDRを示すが、ChothiaCDRは下線で示す。
F(ab)-2変異体は、分子モデル化に基づく。この分子において、幾つかのマウスフレームワーク残基がヒトフレームワークに組み込まれた。F(ab)-2において、上掲のKabatらによって与えられたCDRの定義(種間の配列可変性に基づく)が、CDR-H1及びCDR-H2を除いて使用された。
配列可変性(Kabatら)に基づくCDR-H1の定義は、抗体−抗原複合体の結晶学的研究(Chothiら)に基づくものとの間で顕著に異なる(図1)。従って、CDR-H1は両方の定義、すなわちヒト残基26−35を含むように再定義した。
結果として、最小量の電荷でF(ab)-2がヒトからマウス残基まで生成され、それらは結合を維持するのに必要とされると思われた。埋め込まれた残基のCDRのコンホメーションへの影響を試験し、並びに、重要なフレームワーク残基の分子モデル化の予測可能な効果を評価し、他の興味深い残基を試験するために、さらに10の変異体を生成した。
モデル化は、フレームワーク残基VH24がCDR-L1コンホメーションに影響し、VH37がVH−VH界面に影響しうることを示唆した。しかしながら、ヒト残基のVH24[F(ab)-5]またはVH37[F(ab)-7]への置換は、結合の最小の抑制を示した。これに対して、フレームワーク位置VH78におけるマウスPheのヒトLeu[F(ab)-6]への置換は、結合のかなりの抑制を生じた。モデルは、この残基がCDR-H1及び/またはCDR-H2のコンホメーションに影響していることを示唆した。
F(ab)-2に比較してかなり向上した結合性を示すF(ab)-10は、VL及びVHドメインの両方に埋め込まれた(フリーなアミノ酸の5%未満のアクセス可能な表面領域を持つ残基と定義された)全ての残基がマウスMaE11のものである変異体である。要するに、F(ab)-10は、VH及びVLにおいて唯一露出された、非-CDR残基がヒト残基に換えられたマウスMaE11と考えられる。
ヒトVL55残基GluをマウスGlyに置換し、VL57においてGlyのGluへの同様の置換をすることによりF(ab)-8を構築した。F(ab)-2はヒト残基を用いたが、F(ab)-8は、これらの位置でマウス残基を用いた。表3に簡潔にまとめたように、これらの残基の置換はレセプター結合に何ら衝撃を与えない。
ヒト化Mae11変異体
(a)マウス残基は斜体字で記載し;残基番号はKabatらに従った。
(b)3つの可溶性レセプターアッセイの平均及び標準偏差。
(c)F(ab)X/F(ab)-2比>16は、この変異体が用いた最も高いF(ab)濃度においても結合性を示さなかったことを意味する。
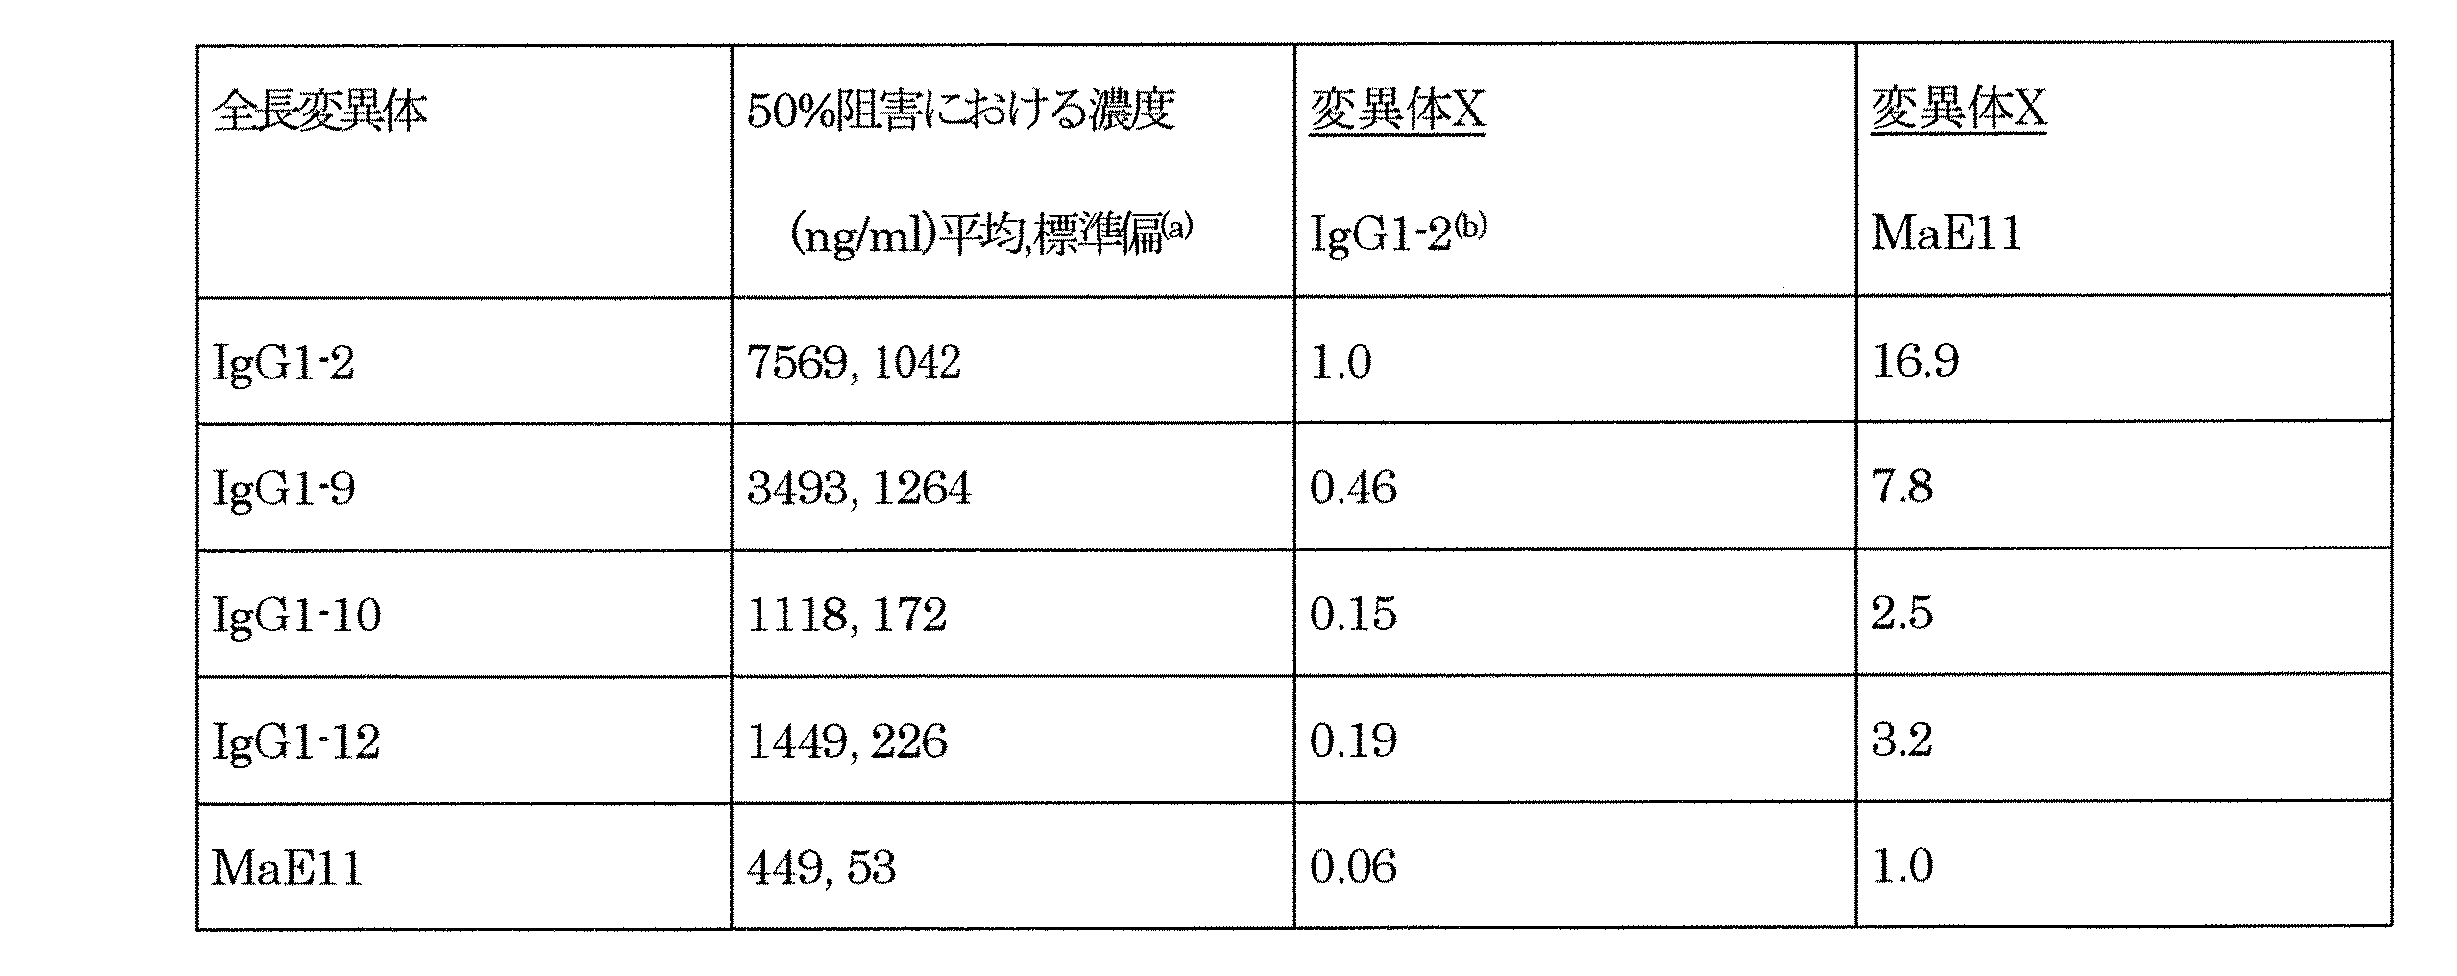
マウスMaE11に最も近い結合性を有すると決定されたF(ab)変異体、即ち、F(ab)-2、F(ab)-9、F(ab)-10及びF(ab)-12を、全長IgG1分子の生成に用いた。変異体F(ab)-2またはMaE11に比較したこれらの分子の結合性は、F(ab)フラグメントで示された結合性に匹敵するものであった。これらの結果を表4に示す。
ヒト化MaE11 IgG1変異体
マウスMaE11は、フリーなIgEのマスト細胞上のFcεRIへの結合を妨害するが、IgE-担持FcεRIへの結合によるヒスタミン放出はトリガーしない。図4に示すように、マウスMaE11及びヒト化変異体12(IgG1−12)の両方、並びにネガティブアイソタイプコントロール抗体MOPC21及びネガティブアイソタイプコントロールヒト化4D5(Carterら、上記)は、CHO 3D10細胞上のIgE-担持FcεRIに結合しなかった。これに対して、IgEには結合するがIgEのFcεRIへの結合を防止しないマウスMaE1抗体は、IgE-担持FcεRIに結合した。ヒトIgG1コントロール(ヒト化4D5)とは異なり、マウスIgG1アイソタイプ(MOPC21と表現)は、これらの細胞に約10%の非特異的なバックグラウンド結合を示した。MaE11は、MOPC21コントロールの上方に染色を与えず、ヒト化変異体12は、ヒト化4D5コントロールの上方に染色を与えなかった(図4)。
MaE11CDRの配列は、荷電した残基が優勢であることを示す(図1)。CDR-L1は3つのAsp残基を含むが、CDR-L3はHis、Glu及びAspを有する。CDR-H3は、3つのHis残基を有する。マウス及びヒト化MaE11のモデルは、これら荷電残基の全てが空間的に接近していることを示した(図示せず)。これに対して、CDR-H2のAsp54のみは、他の荷電残基と空間的に離間していた。アラニンは、部位指向性突然変異(Kunkel, T.A. (1985), Proc. natl. Acad. Sci. USA 82: 488)によって、これらの荷電残基の各々に置換されて変異体を生成した。CDR-L1において、3つのAsp残基の1つ、Asp VL32bの変換は、IgE結合を有効に低下させたが[F(ab)-16;表5]、他のAsp残基の置換は最小の効果しか持たなかった[F(ab)-14;F(ab)-15]。CDR-L3においてGlu VL93及びAsp VL94を同時にアラニンに変換すると[F(ab)-17;表5]、結合性は低下したが、VL32における置換とは程度が異なっていた。CDR-H3における3つのHis残基を個々にAlaに置換すると、僅かに向上した結合性[F(ab)-21]、または結合性の1/3への低下[F(ab)-20及びF(ab)-22]のいずれかとなった。しかし、3つのHisを同時に置換すると結合性が無くなった[F(ab)-19]。荷電残基がIgEへの直接結合に含まれるのか、あるいは、各々のCDRに幾分のコンホメーション的安定性を与えるのかを決定するのは容易ではないが、変異体F(ab)-13からF(ab)-20は、CDR-L1及びCDR-H3がIgE結合における重要な決定基であることを示した。
ヒト化M a e l l F ( a b ) C D R残基変異体
(b)3つの可溶性レセプターアッセイの平均及び標準偏差。
(c)F(ab)X/F(ab)-2比>16は、この変異体が用いた最も高いF(ab)濃度においても結合性を示さなかったことを意味する。
MaE11からの機能的、ヒト化マウス抗IgE抗体の生成は、幾つかのマウスフレームワーク残基のヒトフレームワークへの置換を含む。さらに、荷電したCDR残基のマッピングは、これらの中に抗体−IgE相互作用において重要なものがあることを示した。
以前の研究(Carterら,上記; Shearman, C.W.ら (1991), J. Immunol. 147: 4366; Kettleborough, C.A.ら(1991), Protein Eng. 4: 773; Tempest, P.R. (1991), Biotechnology 9: 266)と一致して、変異体F(ab)-1からF(ab)-12は、フレームワーク残基が抗体機能に重大な効力を有し得ることを示す。これは、6つのマウスCDRのみがヒトフレームワーク残基に移植された直鎖CDRスワップであるF(ab)-1を考えるときに特に強調される。この説明はCDR-H2も含む。位置VH63及びVH67に埋め込まれた疎水性残基は、CDR-H2のコンホメーションに影響しうる。変異体は、位置VH63及びVH67における4つの組み合わせ、即ち、マウスLeuとIle、各々[MaE11とF(ab)-11]、ValとPhe[F(ab)-2]、LeuとPhe[F(ab)-1]及びValとIle[F(ab)-12]を含んで生成された。これら4つの変異体の結合データからの明確な推論は、重要な残基がVH67であり、マウスMaE11に匹敵する親和性を与えるにはマウスIleでなければならないことを示している。F(ab)-1において、この残基はヒトPheであった。
変異体F(ab)-10は、マウス抗体免疫原性が露出されたフレームワーク残基のみを換えることにより抑制できることを提唱したPadlan(Padlan, E.A. (1991), Mol Immunol. 28: 489)によって示唆された仮説で設計された。この変異体において、疎水性はVL及びVHドメイン両方の内部であり、言い換えれば、この変異体は、VL及びVHの露出されたフレームワーク残基のみがヒト配列に変換されたマウスMaE11である。F(ab)-10はマウスMaE11と近い結合性を示すが、単一のアミノ酸ドメイン、VH67におけるヒトからマウスへの変換は、結合性において同等の向上をもたらした[F(ab)-12、IgG1-12]。
ヒスタミン放出アッセイ
序文:
これは、抗体のアレルゲン-感受性RBL48細胞からのヒスタミン放出をブロックする能力に基づいて、組み換えヒト化モノクローナル抗IgE抗体の生物学的活性を定量的に測定するラットのマスト細胞ヒスタミンアッセイ(RMCHA)である。さらに、この測定法は、ヒトの体内に似た生理学的条件下で行われる。RBL48細胞系は、高親和性ヒトIgEレセプター(FcεRI)のα-サブユニットで逐次形質転換された親ラットマスト細胞系RBL2H3から誘導される。Gilfillan A.M.ら, J. Immunol. 149(7): 2445-2451 (1992)。
RBL48細胞(Gilfillanら、上記)は、加湿した5%CO2インキュベータ(Fischer, モデル#610)内のT175組織培養フラスコ(Falcon, #3028)中で、10%ウシ胎児血清、2mMグルタミン、及び500μg/mlの活性ゼラチン(Gibco, #860-1811)を添加したsIMDM、Iscoveの変性ダルベッコ媒質中、37℃で成長させた。細胞を、PBS/0.05%、トリプシン/0.53mMEDTAの溶液4mLに37℃で2分間さらして収穫した後、遠心分離(400xg、10分)し、新鮮なsIMDMに再懸濁した。懸濁物中の細胞をヘモサイトメータ(Reichert-Jung)で数え、密度を0.4×106細胞/mlに調整した。次いで、細胞を、96ウェルのU字型組織培養プレート(Linbro)の内側の60ウェルに、100μl/ウェル(ウェル当たり40,000細胞)で播種し、加湿した5%CO2インキュベータ内で、37℃において24時間培養した。(吸引を介して)200μl/ウェルのsIMDMで1回洗浄した後、細胞を、ブタクサ(ragweed)-特異的IgE(RSIgE、10ng/ml、23.48ng/mlトータルIgE、1.43%ブタクサ-特異的ヒト血漿、North American Biological, ロット#42-365054)を含む90μl/ウェルのアッセイ希釈溶液(sIMDM;3U/mlNa-ヘパリン)とともに30分間プレインキュベートした。
プレインキュベーション時間の後、抗IgE抗体(アッセイ希釈剤で希釈、0.06−39.4μg/ml)またはアッセイ希釈液(全ヒスタミン放出、バックグラウンド、及びブタクサ対照に対して)のいずれか10μl/ウェルを細胞に添加し、プレートを、インキュベータ内で5%CO2中37℃で24時間インキュベートした。インキュベーションの後、細胞を吸引し、200μl/ウェルのsIMDMで3回洗浄した。洗浄に続いて、細胞を、(1)0.5%triton溶液(全ヒスタミン放出用)、(2)ヒスタミン放出緩衝液(HRB、50%D2O、0.8%NaCl、1.3mMCaCl2、sIMDM)、または(3)ブタクサ抗原(HRB中のNIH#A-601-903A-185、0.1μg/ml)のいずれか100μl/ウェルとともに37℃で30分間インキュベートし、氷上に移すことにより反応を停止させた(100%D2O=100%D2O、0.8%NaCl、1.3mMCaCl2)。
抗IgEモル比対ブタクサ誘発性ヒスタミン放出のパーセント阻害のグラフは、e26抗体のF(ab)形態が、e25のF(ab)形態よりも優れたブタクサ誘発性ヒスタミン放出特性を有することを示している。E26は、ブタクサ誘発性ヒスタミン放出を投与量に依存する阻害を示し、半最大阻害(half-maximal inhibition)のモル比は44:1(抗IgE:RSIgE)である。これに対して、e25は、ブタクサ誘発性ヒスタミン放出を、極めて高いモル比においてのみ阻害する(抗IgE:RSIgE200:1から1550:1の間)。e25曲線についての半最大阻害モル比は、400:1から500:1と見積もられる。従って、分子の結合親和性の尺度である半最大阻害モル比のデータに基づいて、e26分子はRSIgEにe25分子の約10倍良好に結合する。
実施例4
ファージ表示実験
序文:
この実施例は、一価のファージ表示(display)及びえE25ヒト化抗IgE抗体から誘導されるF(ab)フラグメントの選択を通して生成される、特異的親和性の向上した抗IgE抗体を記載する(Prestaら,J.Immunol.151:2623(1993))。
方法:
I.一価のF(ab)-ファージライブラリーの構築
幾つかのF(ab)ライブラリーを構築した。出発ベクターとして、(IsoAsp異性化を排除するため)VL置換D32Eを含むe25変異体を、バクテリオファージM13g3pのC-末端ドメインに、周知の技術、例えばBassら, Proteins 8: 309 (1990)によって融合させた。このプラスミドは、図10に現れるp426として知られる。第1に、”野生型”F(ab)-ファージ、p426を、ライブラリー特異的”停止”テンプレートの構築のためのテンプレートとして用いた。停止コドン(TAAまたはTGA)を導入することにより、原分子を不活性とし、それによりバックグラウンドの影響、及び、ライブラリー構築のための突然変異誘発段階でのテンプレート特異的な(ハイブリダイゼーション)バイアスを抑制した(Lowman及びWells, Methods: Comp. Methods Enzymol. 3: 205 (1991))。これらのテンプレートは、一本鎖のテンプレート指向性突然変異を用いて構築し(Kunkelら, Methods Enzymol. 204: 125 (1991))、オリゴヌクレオチドを表10に列挙した。
ランダム突然変異誘発反応の産物は、エレクトロポレーションによってE.coli細胞(Stratagene, XL-1 Blue)に形質転換し、M13K07ヘルパーファージとともに37℃で終夜成長させることにより増幅した(Vierra及びMessing, Methods Enzymol. 153: (1987))。
F(ab)変異体を表現するファージ粒子の親和性選択のために、E.coli培地上清から塩化ナトリウム/ポリエチレングリコール(NaCl/PEG)沈降によりファージを調製した。このファージをPBS緩衝液に懸濁し、次いで0.05%のTweenTM-20を含むウマ血清(カタログ番号A-3311-D, Hyclone, Logan, UT)中に希釈し、同様に非-表示ファージをネガティブコントロールとした。ポジティブコントロールとして、”野生型”e426F(ab)-ファージを非-表示ファージと混合し、モック選択を施した。
ブロッキング溶液を除去し、プレート上においてファージ溶液を室温で1時間インキュベートした。その後、ファージ溶液を除去し、プレートをPBS/TweenTM-20(0.05%)緩衝液で10回洗浄した。ウェルをPBS/Tweenで満たし、さらに10分間インキュベートし、その後再びプレートを10回洗浄した。
プレートに結合したままのF(ab)-ファージを、Tris-HClで中性化した20mMのHCl、pH8で溶離し、上記のヘルパーファージで成長させた。ファージのアリコートを順次希釈し、新鮮なXL-1ブルー細胞と混合し、適当な抗生プレートにプレートし、F(ab)-表示(カルベニシリン耐性;CFUa)または非-表示(クロロアンフェニコール耐性;CFUc)の溶離されたファージのCFU(コロニー形成単位)の数を数えた。各ラウンドにおける非-表示ファージに対するF(ab)-表示の富化(Emut)を、溶離プールでの(CFUa/CFUc)を最初のプールでの(CFUa/CFUc)で除することにより計算した。野生型コントロールファージについての富化(Ewt)を同様にして計算した。
3ラウンドの選択後のVH CDR3ライブラリーからのクローンの配列分析は、このライブラリーが、実質的に単一のクローン、即ち、101−103の位置に野生型残基を持ち、置換基H105T及びH107Yを持つ214-3.1に変換されたことを示した(表15)。
ファージ-結合選択の結果を評価するために、ファージをE.coliXL-1ブルー細胞中に形質転換し、液体培地中で成長させるか、抗生物質含有プレート上にプレートした。競合的-ファージ-ELISA(Cunninghamら, EMBO J. 13: 2508 (1994); Lowman, Chapter 24, in Methods in Molecular Biology, vol.87, S. Cabilly(ed.), Humana Press Inc., Totawa, NJ (1997))による配列及び結合アッセイのために、これらのプレートからクローンをランダムに取った。
I g E結合選択からのF ( a b )-ファージクローン類
VH CDR2ファージクローン類
タンパク質内の異なる部位での突然変異は、タンパク質機能に付加的効果を示すことが多い(Wells, Biochemistry 29: 8509 (1990))。従って、上記の最初のファージライブラリーからの幾つかの突然変異を、IgEへの結合性を向上させるために組み合わせた。
抗IgE抗体の免疫原性の増大の可能性を抑制するために、E-25からの突然変異の割合を最小にする必要があった。その結果、個々に測定したとき最も高い親和性の向上を示したファージ変異体からの突然変異のみを用いた。さらに、与えられたファージクローンが観察される頻度を、発現レベル及び/または蛋白質分解安定性に関連づけることができる(Lowman及びWells, 1991,上記)。VL1ライブラリー、212-6.7、e26とも命名される、からの一つの特別なクローンを選択したが、これは、ファージ-ELISAアッセイにおいてe426に対して25倍の向上した親和性を示したからである。
序文:この実施例の目的は、IgEレセプターキメラでコートされたプレートに抗IgEF(ab)及びビオチン-IgEを同時に添加した場合、固定された高親和性IgEレセプターIgGキメラと、液相でのビオチン化ヒト化IgEへの結合について競合する抗IgE F(ab)がどのように異なるかを比較することである。抗IgE F(ab)濃度を上昇させると、プレート上のレセプターに結合できるビオチンIgEの量が減少し、その結果、分光光度計で測定した吸光度が低下した。
結論:図8のプロットは、高親和性レセプターに対して、E26及びE27の両方がE25より大きな親和性を有し、E27が最大の親和性を有することを示している。
幾つかのF(ab)フラグメントのレセプター結合親和性を、BIAcoreTM-2000表面プラズモン共鳴システム(BIAcore, Inc.)を用いて測定した結合及び解離速度定数から計算した(Lofas及びJohnson, J. Chem. Soc. Commun. 21, 1526-1528 (1990))。バイオセンサーチップは、製造者(BIAcore)の指示に従って、N-エチル-N’-(3-ジメチルアミノプロピル)-カルボジイミド塩酸塩(EDC)及びN-ヒドロキシスクシンイミド(NHS)を用いたIgEの共有結合のために活性化した。IgEは、10nMの酢酸ナトリウム緩衝液(pH4.5)中に希釈し、さらに約30μg/mlに希釈し、チップ上に注入して、固定化された材料の800〜12,400応答単位(RU)のシグナルを得た。RUのシグナルは固定化された材料の量に比例するので、これは、マトリクス上の固定化されたIgEが0.4〜6.5pmol/cm2の密度範囲にあることを示す。最後に、1Mのエタノールアミンをブロッキング剤として注入した。再生は4.5MのMgCl2で行った。
解離データを、1部位モデルに適合させて、koff+/-s.d.(測定の標準偏差)を得た。各結合曲線について疑-一次速度定数(ks)を計算し、タンパク質濃度の価数としてプロットしてkon+/-s.e.(適合の標準誤差)を得た。Fab:IgE結合の平衡解離定数、Kdは、SPR測定からkoff/konとして計算した。解離したF(ab)の再結合といった実験上の人為的結果無しに、観察された解離速度(off rate)は、F(ab)濃度には無関係であった。また、平衡解離定数、Kdはkoffに反比例するので、親和性の向上の見積りは、結合速度(kon)が全ての変異体について一定であると仮定して行うことができる。解離速度を、計算した解離の半減期とともに表18に示した。
解難定数
抗IgE F(ab) E-25(Prestaら, J. Immunol. 151: 2623-2632 (1993))及びp426から誘導されたファーゲミド(phagemids)における変異体(図10)を、E.coli株34B8において発現させた。2YT媒質中のつまようじ(toothpick)培地(10ml)を、50μg/mlのカルベニシリンとともに37℃で8時間インキュベートし、次いで50μg/mlのカルベニシリンを含む1リットルの変性AP-5に移し、37℃で24時間インキュベートした。培地を、4℃において、500mlボトル中、7,000rpmで 15分間遠心分離した。ペレットを少なくとも3時間−20℃で凍結させた。各500mlのペレットを、1mMのベンズアミジン(Sigma)を含む50mMのpH8.0のTris中の25%冷スクロース12.5ml中に4℃で懸濁した。懸濁物を4℃で3時間攪拌して可溶化させた。懸濁物を、4℃において、18,000rpmで15分間遠心分離し、上清中に発現したF(ab)をタンパク質G(Pharmacia)アフィニティクロマトグラフィで精製した。カラムを、10mMのTris(pH7.6)及び1mMのEDTA(pH8.0)の溶液で洗浄し、F(ab)をカラムの2.5倍の容量の100mM酢酸(pH3.0)で溶離し、即座に0.5容量のpH8.0の1MTrisで中性pHに戻した。溶離液は濃縮し、centricon 30ミクロセントレーター(microcentrator)(Amicon)でPBSに緩衝液交換した。タンパク質濃度は、分光光度計(Beckman DU 64)で280nMの吸収によって測定し、サンプルの純度は、5%β-メルカプトエタノールでの還元条件下において4−20%のSDS PAGEゲル(Novex)を用いて見積もった。
ファージ-ELISA競合実験の結果は、e26F(ab)-ファージは、e426に対して9倍の親和性の向上であったが、変異体e695、e696及びe697の組み合わせは、e426-ファージより20−40倍向上したことを示した。ファージ-誘導突然変異のさらなる組み合わせは、同様に向上した親和性を持つ抗体変異体を生じ得る。
F(ab)可溶性タンパク質をビオチン-IgEプレートアッセイで試験した場合、e26F(ab)及びe27F(ab)は、FcεR1-IgGへのIgE結合阻害について、e25より各々約10倍及び30倍向上した。BIAcore分析による解離速度測定は、これらの相対的親和性を支持した。特に、e26及びe27は、e25より7.7倍及び22倍遅い解離速度を示した。半減期が長いことは、IgEが”占有され”、即ち、高親和性レセプターに長い間結合することができないことを意味し、従って、抗IgE治療的に潜在能力が向上したこととなる。
このように、平衡及び速度論的結合データは、e26及びe26F(ab)が、各々e25の約10倍及び30倍の緊密さでIgEに結合するという結論を支持している。対応するF(ab)変異体を含む全長抗体(IgG)は、e25IgGと類似の相対的親和性を示すと予想される。
Claims (5)
- アスパルチル異性化の不活性化を示さず、無修飾ポリペプチド以上である標的分子IgEに対する親和性を有する抗IgE抗体である修飾ポリペプチドを調製する方法において、
a)異性化を受けやすいアスパラチル残基を同定し;
b)代替残基を置換し、得られた変異体を標的分子に対する親和性に対して、ファージディスプレイを使用する親和成熟法でスクリーニングし、該工程が、
(i) ポリペプチドのアミノ酸配列の変化を生じるポリペプチドをコードしている遺伝子における一又は複数のコドンの置換、欠失、又は挿入により、ファージコートタンパク質に融合した構造的に関連するポリペプチドのライブラリを調製し、
(ii) 該ポリペプチドをコードしているDNAを含むファージミド粒子の表面に各関連ポリペプチドの単一の複製を示すことを更に含み;
c)アスパラチル残基が変化し、無修飾ポリペプチド以上である標的分子に対する親和性を有する修飾ポリペプチドを選択する;
ことを含んでなる方法。 - 無修飾抗体が図12[配列番号:13−14]に「E25」として示された配列を有している請求項1に記載の方法。
- 置換された残基が可変軽鎖CDR1残基Asp32Glu、Gln27Lys及びSer28Proである請求項2に記載の方法。
- 更に置換された残基が可変重鎖CDR2残基Thr53Lys、Asp55Ser、Ser57Glu及びAsn59Lysである請求項3に記載の方法。
- 請求項1に記載の方法を実施することを含んでなる、抗体のブタクサ誘発性ヒスタミン放出阻害性を改良する方法。
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US08/887,352 US5994511A (en) | 1997-07-02 | 1997-07-02 | Anti-IgE antibodies and methods of improving polypeptides |
Related Parent Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP50726199A Division JP4286327B2 (ja) | 1997-07-02 | 1998-06-30 | 改良抗IgE抗体及びポリペプチドの改良方法 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2009055902A true JP2009055902A (ja) | 2009-03-19 |
| JP4371248B2 JP4371248B2 (ja) | 2009-11-25 |
Family
ID=25390964
Family Applications (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP50726199A Expired - Lifetime JP4286327B2 (ja) | 1997-07-02 | 1998-06-30 | 改良抗IgE抗体及びポリペプチドの改良方法 |
| JP2008151343A Expired - Lifetime JP4371248B2 (ja) | 1997-07-02 | 2008-06-10 | 改良抗IgE抗体及びポリペプチドの改良方法 |
Family Applications Before (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP50726199A Expired - Lifetime JP4286327B2 (ja) | 1997-07-02 | 1998-06-30 | 改良抗IgE抗体及びポリペプチドの改良方法 |
Country Status (28)
| Country | Link |
|---|---|
| US (4) | US5994511A (ja) |
| EP (1) | EP0996728B1 (ja) |
| JP (2) | JP4286327B2 (ja) |
| KR (1) | KR100547538B1 (ja) |
| CN (1) | CN1260357C (ja) |
| AR (2) | AR013169A1 (ja) |
| AT (1) | ATE253116T1 (ja) |
| AU (1) | AU741115B2 (ja) |
| BR (2) | BRPI9810654C1 (ja) |
| CA (1) | CA2295540C (ja) |
| CZ (1) | CZ300724B6 (ja) |
| DE (1) | DE69819332T2 (ja) |
| DK (1) | DK0996728T3 (ja) |
| ES (1) | ES2210778T3 (ja) |
| HU (1) | HU228845B1 (ja) |
| IL (2) | IL133973A0 (ja) |
| IS (1) | IS2039B (ja) |
| NO (1) | NO324992B1 (ja) |
| NZ (1) | NZ501842A (ja) |
| PL (1) | PL194562B1 (ja) |
| PT (1) | PT996728E (ja) |
| RO (1) | RO120848B1 (ja) |
| RU (1) | RU2242515C2 (ja) |
| SK (1) | SK284395B6 (ja) |
| TR (1) | TR200000206T2 (ja) |
| TW (2) | TWI233946B (ja) |
| WO (1) | WO1999001556A2 (ja) |
| ZA (1) | ZA985500B (ja) |
Cited By (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2013508740A (ja) * | 2009-10-26 | 2013-03-07 | ジェネンテック, インコーポレイテッド | 治療的抗IgE抗体に特異的な抗体を検出するためのアッセイ及びアナフィラキシーにおけるそれらの使用 |
| JP2013521772A (ja) * | 2010-03-11 | 2013-06-13 | ライナット ニューロサイエンス コーポレイション | pH依存性の抗原結合を有する抗体 |
| JP2019522470A (ja) * | 2016-06-10 | 2019-08-15 | ユーシービー バイオファルマ エスピーアールエル | 抗IgE抗体 |
Families Citing this family (185)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US6685940B2 (en) | 1995-07-27 | 2004-02-03 | Genentech, Inc. | Protein formulation |
| US20040197326A1 (en) * | 1995-07-27 | 2004-10-07 | Genentech, Inc. | Method for treatment of allergic asthma |
| US6267958B1 (en) | 1995-07-27 | 2001-07-31 | Genentech, Inc. | Protein formulation |
| US20040146507A1 (en) * | 1996-11-27 | 2004-07-29 | Genentech, Inc. | Antibody mutants |
| US7122636B1 (en) | 1997-02-21 | 2006-10-17 | Genentech, Inc. | Antibody fragment-polymer conjugates and uses of same |
| US5994511A (en) * | 1997-07-02 | 1999-11-30 | Genentech, Inc. | Anti-IgE antibodies and methods of improving polypeptides |
| US6172213B1 (en) * | 1997-07-02 | 2001-01-09 | Genentech, Inc. | Anti-IgE antibodies and method of improving polypeptides |
| US6504013B1 (en) | 2000-02-01 | 2003-01-07 | Idexx Laboratories, Inc. | Canine allergy therapeutic recombinant chimeric anti-IgE monoclonal antibody |
| US7393529B2 (en) * | 1998-04-09 | 2008-07-01 | Idexx Laboratories, Inc. | Methods and compositions for inhibiting binding of IgE to a high affinity receptor |
| US6818749B1 (en) * | 1998-10-31 | 2004-11-16 | The United States Of America As Represented By The Department Of Health And Human Services | Variants of humanized anti carcinoma monoclonal antibody cc49 |
| US7759133B2 (en) * | 1998-12-22 | 2010-07-20 | Alk-Abello A/S | Method of detecting and/or quantifying a specific IgE antibody in a liquid sample |
| GB9908533D0 (en) | 1999-04-14 | 1999-06-09 | Novartis Ag | Organic compounds |
| US20020019009A1 (en) * | 1999-12-09 | 2002-02-14 | Roggen Erwin Ludo | High throughput screening (HTS) assays |
| ATE293159T1 (de) * | 1999-12-14 | 2005-04-15 | Thermo Biostar Inc | Stabilisierendes verdünnungsmittel für polypeptide und antigene |
| AU2001233027A1 (en) * | 2000-01-27 | 2001-08-07 | Genetics Institute, Llc | Antibodies against ctla4 (cd152), conjugates comprising same, and uses thereof |
| US7018801B2 (en) * | 2000-02-11 | 2006-03-28 | Board Of Regents, The University Of Texas System | Selection of peptides with antibody-like properties |
| US20030143638A1 (en) * | 2000-04-07 | 2003-07-31 | Mahito Hirai | Antibody/carrier complex, process for producing the same, method of controlling antigen-antibody reaction by using the same and immunoassay method |
| US7176037B2 (en) * | 2000-07-13 | 2007-02-13 | The Scripps Research Institute | Labeled peptides, proteins and antibodies and processes and intermediates useful for their preparation |
| US6951947B2 (en) * | 2000-07-13 | 2005-10-04 | The Scripps Research Institute | Labeled peptides, proteins and antibodies and processes and intermediates useful for their preparation |
| DE60139944D1 (de) | 2000-10-12 | 2009-10-29 | Genentech Inc | Niederviskose konzentrierte proteinformulierungen |
| US8703126B2 (en) | 2000-10-12 | 2014-04-22 | Genentech, Inc. | Reduced-viscosity concentrated protein formulations |
| EP1355919B1 (en) * | 2000-12-12 | 2010-11-24 | MedImmune, LLC | Molecules with extended half-lives, compositions and uses thereof |
| US20030133939A1 (en) | 2001-01-17 | 2003-07-17 | Genecraft, Inc. | Binding domain-immunoglobulin fusion proteins |
| US7754208B2 (en) | 2001-01-17 | 2010-07-13 | Trubion Pharmaceuticals, Inc. | Binding domain-immunoglobulin fusion proteins |
| US20050118164A1 (en) * | 2001-03-09 | 2005-06-02 | William Herman | Targeted ligands |
| US6966992B2 (en) * | 2001-03-19 | 2005-11-22 | Akzo Nobel Nv | Method of purification of molecules using unbranched terminal alkyldiols |
| WO2002102303A2 (en) * | 2001-05-01 | 2002-12-27 | Medimmune, Inc. | Crystals and structure of synagis fab |
| US20040146502A1 (en) * | 2001-05-03 | 2004-07-29 | Elisabeth Latour | Use of organic compounds |
| GB0113179D0 (en) | 2001-05-31 | 2001-07-25 | Novartis Ag | Organic compounds |
| US20030087372A1 (en) * | 2001-06-13 | 2003-05-08 | Genentech, Inc. | Methods of culturing animal cells and polypeptide production in animal cells |
| US20030073249A1 (en) * | 2001-07-07 | 2003-04-17 | Lee Duen | Allergen detection chip |
| JP2003137804A (ja) * | 2001-10-31 | 2003-05-14 | Morinaga Milk Ind Co Ltd | インターロイキン−18誘導剤 |
| US7179798B2 (en) * | 2001-11-16 | 2007-02-20 | Russell R. Roby | Methods and compositions for the treatment of pain and other hormone-allergy-related symptoms using dilute hormone solutions |
| AU2002362197A1 (en) * | 2001-12-28 | 2003-07-24 | Chugai Seiyaku Kabushiki Kaisha | Method of stabilizing protein |
| AU2003207459A1 (en) * | 2002-01-03 | 2003-07-24 | The Scripps Research Institute | Cancer-associated epitope |
| GB0200429D0 (en) * | 2002-01-09 | 2002-02-27 | Novartis Ag | Organic compounds |
| US20050142539A1 (en) * | 2002-01-14 | 2005-06-30 | William Herman | Targeted ligands |
| EP1472275B1 (en) * | 2002-02-05 | 2008-12-17 | Genentech, Inc. | Protein purification |
| US20040018573A1 (en) * | 2002-04-18 | 2004-01-29 | Power Scott D | Production of functional antibodies in filamentous fungi |
| EP1532162B1 (en) | 2002-06-28 | 2013-08-07 | THE GOVERNMENT OF THE UNITED STATES OF AMERICA, as represented by THE SECRETARY, DEPARTMENT OF HEALTH AND HUMAN SERVICES | Humanized anti-tag-72 cc49 for diagnosis and therapy of human tumors |
| NZ540194A (en) * | 2002-11-08 | 2008-07-31 | Ablynx Nv | Single domain antibodies directed against tumour necrosis factor-alpha and uses therefor |
| EP1558645B1 (en) * | 2002-11-08 | 2011-07-27 | Ablynx N.V. | Stabilized single domain antibodies in pharmaceutical composition adapted for inhalation |
| US20100003253A1 (en) * | 2002-11-08 | 2010-01-07 | Ablynx N.V. | Single domain antibodies directed against epidermal growth factor receptor and uses therefor |
| US20060034833A1 (en) * | 2002-11-08 | 2006-02-16 | Els Beirnaert | Single domain antibodies directed against interferron-gamma and uses therefor |
| US9320792B2 (en) | 2002-11-08 | 2016-04-26 | Ablynx N.V. | Pulmonary administration of immunoglobulin single variable domains and constructs thereof |
| US20060034845A1 (en) * | 2002-11-08 | 2006-02-16 | Karen Silence | Single domain antibodies directed against tumor necrosis factor alpha and uses therefor |
| US7056702B2 (en) * | 2002-12-16 | 2006-06-06 | Kimberly Clark Co | Detecting lipocalin |
| US20060234296A1 (en) * | 2003-02-01 | 2006-10-19 | Sanjaya Singh | Method for generating high affinity antibodies |
| WO2004070010A2 (en) * | 2003-02-01 | 2004-08-19 | Tanox, Inc. | A method for generating high affinity antibodies |
| WO2004078965A1 (ja) * | 2003-03-05 | 2004-09-16 | Juridical Foundation The Chemo-Sero-Therapeutic Research Institute | 大腸菌における異種蛋白質の製造方法 |
| US20050158303A1 (en) * | 2003-04-04 | 2005-07-21 | Genentech, Inc. | Methods of treating IgE-mediated disorders comprising the administration of high concentration anti-IgE antibody formulations |
| PT1610820E (pt) * | 2003-04-04 | 2010-12-16 | Novartis Ag | Formulações de elevada concentração de anticorpos e proteínas |
| GB2401040A (en) | 2003-04-28 | 2004-11-03 | Chugai Pharmaceutical Co Ltd | Method for treating interleukin-6 related diseases |
| WO2004097019A1 (ja) * | 2003-04-30 | 2004-11-11 | Japan Science And Technology Agency | ヒト抗ヒトインターロイキン-18抗体およびその断片、並びにそれらの利用方法 |
| US20090263381A1 (en) * | 2003-07-31 | 2009-10-22 | Robinson Cynthia B | Combination of dehydroepiandrosterone or dehydroepiandrosterone-sulfate with an anti-ige antibody for treatment of asthma or chronic obstructive pulmonary disease |
| US20050026881A1 (en) * | 2003-07-31 | 2005-02-03 | Robinson Cynthia B. | Combination of dehydroepiandrosterone or dehydroepiandrosterone-sulfate with an anti-IgE antibody for treatment of asthma or chronic obstructive pulmonary disease |
| US20050065136A1 (en) * | 2003-08-13 | 2005-03-24 | Roby Russell R. | Methods and compositions for the treatment of infertility using dilute hormone solutions |
| WO2005021594A2 (en) * | 2003-08-29 | 2005-03-10 | The Government Of The United States Of America, As Represented By The Secretary Of The Department Of Health And Human Services | Minimally immunogenic variants of sdr-grafted humanized antibody cc49 and their use |
| CA2537976A1 (en) * | 2003-09-05 | 2005-03-17 | The Scripps Research Institute | Ozonation products of cholesterol for the treatment and prevention of artherosclerosis and/or cardiovascular diseases |
| WO2005023831A1 (en) * | 2003-09-05 | 2005-03-17 | The Scripps Research Institute | Detection of cholesterol ozonation products |
| US20050142609A1 (en) * | 2003-10-08 | 2005-06-30 | Ebioscience | Native immunoglobulin binding reagents and methods for making and using same |
| WO2005035574A1 (ja) | 2003-10-09 | 2005-04-21 | Chugai Seiyaku Kabushiki Kaisha | IgM高濃度安定化溶液 |
| JP2007529718A (ja) * | 2004-03-12 | 2007-10-25 | ザ スクリップス リサーチ インスティチュート | 蛋白質活性の検出および定量のための蛍光シグナル発光型生細胞バイオセンサー分子ならびに色素 |
| EP3269738A1 (en) | 2004-03-24 | 2018-01-17 | Chugai Seiyaku Kabushiki Kaisha | Subtypes of humanized antibody against interleukin-6 receptor |
| ATE524561T1 (de) * | 2004-04-06 | 2011-09-15 | Sinai School Medicine | Verfahren zur bestimmung einer allergenreaktion unter verwendung von mikroarray-immunoassay- techniken |
| WO2005105106A2 (en) * | 2004-04-21 | 2005-11-10 | Roby Russell R | Hormone treatment of macular degeneration |
| GB0410627D0 (en) * | 2004-05-12 | 2004-06-16 | Scancell Ltd | Specific binding members |
| US7604947B2 (en) * | 2004-06-09 | 2009-10-20 | Cornell Research Foundation, Inc. | Detection and modulation of cancer stem cells |
| CN101048427B (zh) | 2004-07-23 | 2015-01-14 | 健泰科生物技术公司 | 抗体或其片段的结晶 |
| US20060025390A1 (en) * | 2004-07-28 | 2006-02-02 | Roby Russell R | Treatment of hormone allergy and related symptoms and disorders |
| US7662926B2 (en) | 2004-09-02 | 2010-02-16 | Genentech, Inc. | Anti-Fc-gamma receptor antibodies, bispecific variants and uses therefor |
| US7655229B2 (en) | 2004-09-02 | 2010-02-02 | Chan Andrew C | Anti-FC-gamma RIIB receptor antibody and uses therefor |
| US20060051347A1 (en) | 2004-09-09 | 2006-03-09 | Winter Charles M | Process for concentration of antibodies and therapeutic products thereof |
| EP1812061A2 (en) * | 2004-10-05 | 2007-08-01 | Tanox Inc. | Treatment and prevention of hypersensitivity and/or anaphylaxis with anti-ige antibodies in patients receiving replacement therapy |
| JO3000B1 (ar) | 2004-10-20 | 2016-09-05 | Genentech Inc | مركبات أجسام مضادة . |
| PA8661401A1 (es) * | 2005-01-28 | 2006-09-08 | Wyeth Corp | Formulaciones del liquido polipeptido estabilizado |
| GT200600031A (es) * | 2005-01-28 | 2006-08-29 | Formulacion anticuerpo anti a beta | |
| GB0502358D0 (en) * | 2005-02-04 | 2005-03-16 | Novartis Ag | Organic compounds |
| PT2360255E (pt) | 2005-03-25 | 2015-04-08 | Nat Res Council Canada | Método para isolamento de polipéptidos solúveis |
| CA2606081C (en) | 2005-04-26 | 2013-09-17 | Markus M. Heiss | Combination of the application of antibodies for immunostimulation together with glucocorticoids |
| US8080249B2 (en) * | 2005-06-30 | 2011-12-20 | Risk Glifford G | Methods to treating chronic obstructive pulmonary disease |
| AU2006272555B2 (en) | 2005-07-25 | 2012-03-08 | Aptevo Research And Development Llc | B-cell reduction using CD37-specific and CD20-specific binding molecules |
| WO2008020827A2 (en) * | 2005-08-01 | 2008-02-21 | Biogen Idec Ma Inc. | Altered polypeptides, immunoconjugates thereof, and methods related thereto |
| US8137670B2 (en) * | 2005-09-29 | 2012-03-20 | Medimmune, Llc | Method of identifying membrane IgE specific antibodies and use thereof for targeting IgE producing precursor cells |
| JP2007172129A (ja) * | 2005-12-20 | 2007-07-05 | Sony Corp | 不揮発性メモリアクセス制御装置および不揮発性メモリ制御システム |
| CN101062949B (zh) * | 2006-04-26 | 2011-07-27 | 上海抗体药物国家工程研究中心有限公司 | 重组抗人IgE单克隆抗体及其制备方法和用途 |
| CN105837690A (zh) | 2006-06-12 | 2016-08-10 | 新兴产品开发西雅图有限公司 | 具有效应功能的单链多价结合蛋白 |
| FR2902799B1 (fr) | 2006-06-27 | 2012-10-26 | Millipore Corp | Procede et unite de preparation d'un echantillon pour l'analyse microbiologique d'un liquide |
| KR20090069330A (ko) * | 2006-10-12 | 2009-06-30 | 와이어쓰 | 유백광/응집체를 감소시키기 위한 항체 용액 중의 이온 강도의 변화 |
| US8163886B2 (en) | 2006-12-21 | 2012-04-24 | Emd Millipore Corporation | Purification of proteins |
| US8569464B2 (en) | 2006-12-21 | 2013-10-29 | Emd Millipore Corporation | Purification of proteins |
| US8362217B2 (en) | 2006-12-21 | 2013-01-29 | Emd Millipore Corporation | Purification of proteins |
| WO2008099188A1 (en) * | 2007-02-15 | 2008-08-21 | Astrazeneca Ab | Binding members for ige molecules |
| AR065368A1 (es) * | 2007-02-15 | 2009-06-03 | Astrazeneca Ab | Anticuerpos para moleculas de ige |
| PL2132230T3 (pl) | 2007-03-22 | 2014-09-30 | Genentech Inc | Apoptotyczne przeciwciała anty-IgE wiążące IgE związaną z błoną |
| UY30994A1 (es) * | 2007-04-02 | 2008-11-28 | Amgen Fremont Inc | Anticuerpos anti-ige |
| PL2155788T3 (pl) * | 2007-04-03 | 2013-02-28 | Amgen Res Munich Gmbh | Swoiste międzygatunkowe bispecyficzne czynniki wiążące |
| WO2008119567A2 (en) † | 2007-04-03 | 2008-10-09 | Micromet Ag | Cross-species-specific cd3-epsilon binding domain |
| AU2008240080A1 (en) * | 2007-04-16 | 2008-10-23 | Momenta Pharmaceuticals, Inc. | Defined glycoprotein products and related methods |
| PE20090245A1 (es) * | 2007-05-08 | 2009-03-17 | Genentech Inc | Anticuerpos anti-muc16 disenados con cisteina y conjugados de anticuerpos y farmacos |
| EP2586788B1 (en) | 2007-07-09 | 2017-11-29 | Genentech, Inc. | Prevention of disulfide bond reduction during recombinant production of polypeptides |
| HUE024877T2 (en) | 2007-10-30 | 2016-02-29 | Genentech Inc | Antibody purification by cation exchange chromatography |
| CA2712432C (en) * | 2008-01-29 | 2018-09-25 | Ablynx N.V. | Methods to stabilize single variable domains |
| US20220281964A1 (en) * | 2008-02-25 | 2022-09-08 | Xencor, Inc. | Fc VARIANTS WITH ALTERED BINDING TO FcRn |
| NZ603059A (en) * | 2008-04-11 | 2014-07-25 | Emergent Product Dev Seattle | Cd37 immunotherapeutic and combination with bifunctional chemotherapeutic thereof |
| WO2009151514A1 (en) | 2008-06-11 | 2009-12-17 | Millipore Corporation | Stirred tank bioreactor |
| IT1391559B1 (it) * | 2008-09-01 | 2012-01-11 | Lofarma Spa | Allergoidi derivati da allergeni |
| PT3190128T (pt) | 2008-09-17 | 2019-02-07 | Xencor Inc | Composições e métodos para tratar distúrbios mediados pela ige |
| RU2481824C2 (ru) | 2008-10-29 | 2013-05-20 | Аблинкс Н.В | Препараты однодоменных антигенсвязывающих молекул |
| CN105646643A (zh) | 2008-10-29 | 2016-06-08 | 阿布林克斯公司 | 单域抗原结合性分子的纯化方法 |
| AU2009313877A1 (en) * | 2008-11-13 | 2011-06-30 | Emergent Product Development Seattle, Llc | CD37 immunotherapeutic combination therapies and uses thereof |
| US8775090B2 (en) | 2008-12-12 | 2014-07-08 | Medimmune, Llc | Crystals and structure of a human IgG Fc variant with enhanced FcRn binding |
| DK2370561T3 (da) | 2008-12-16 | 2019-10-21 | Emd Millipore Corp | Omrøringstankreaktor og fremgangsmåde |
| PE20120359A1 (es) * | 2009-03-06 | 2012-04-13 | Genentech Inc | Formulacion con anticuerpo |
| EP2436397B1 (en) | 2009-05-29 | 2017-05-10 | Chugai Seiyaku Kabushiki Kaisha | Pharmaceutical composition containing antagonist of egf family ligand as component |
| BR112012004697B8 (pt) | 2009-09-01 | 2021-05-25 | Genentech Inc | método para purificar um polipeptídeo compreendendo uma região ch2/ch3 |
| PT2542257T (pt) | 2010-03-01 | 2017-10-09 | Bayer Healthcare Llc | Anticorpos monoclonais otimizados contra inibidor da via do fator tecidual (tfpi) |
| KR101878369B1 (ko) | 2010-03-22 | 2018-07-16 | 제넨테크, 인크. | 단백질-함유 제제의 안정화에 유용한 조성물 및 방법 |
| EP4450523A3 (en) | 2010-04-02 | 2025-03-12 | Amunix Pharmaceuticals, Inc. | Binding fusion proteins, binding fusion protein-drug conjugates, xten-drug conjugates and methods of making and using same |
| AU2011237442A1 (en) | 2010-04-07 | 2012-10-18 | Momenta Pharmaceuticals, Inc. | High mannose glycans |
| CN102892791B (zh) | 2010-05-17 | 2017-05-17 | Emd密理博公司 | 用于纯化生物分子的刺激响应性聚合物 |
| CA2807552A1 (en) | 2010-08-06 | 2012-02-09 | Moderna Therapeutics, Inc. | Engineered nucleic acids and methods of use thereof |
| WO2012030512A1 (en) | 2010-09-03 | 2012-03-08 | Percivia Llc. | Flow-through protein purification process |
| EP2857499A1 (en) | 2010-10-01 | 2015-04-08 | Moderna Therapeutics, Inc. | Engineered nucleic acids and methods of use thereof |
| KR101933197B1 (ko) | 2010-11-08 | 2018-12-27 | 제넨테크, 인크. | 피하 투여용 항―il―6 수용체 항체 |
| WO2012125553A2 (en) | 2011-03-12 | 2012-09-20 | Momenta Pharmaceuticals, Inc. | N-acetylhexosamine-containing n-glycans in glycoprotein products |
| CA2831613A1 (en) | 2011-03-31 | 2012-10-04 | Moderna Therapeutics, Inc. | Delivery and formulation of engineered nucleic acids |
| RU2013155695A (ru) | 2011-06-30 | 2015-08-10 | Дженентек, Инк. | Препараты антител против с-мет |
| US9464124B2 (en) | 2011-09-12 | 2016-10-11 | Moderna Therapeutics, Inc. | Engineered nucleic acids and methods of use thereof |
| PT3682905T (pt) | 2011-10-03 | 2022-04-07 | Modernatx Inc | Nucleósidos, nucleótidos e ácidos nucleicos modificados e respetivas utilizações |
| TWI679212B (zh) | 2011-11-15 | 2019-12-11 | 美商安進股份有限公司 | 針對bcma之e3以及cd3的結合分子 |
| ES2923757T3 (es) | 2011-12-16 | 2022-09-30 | Modernatx Inc | Composiciones de ARNm modificado |
| AR089434A1 (es) | 2011-12-23 | 2014-08-20 | Genentech Inc | Procedimiento para preparar formulaciones con alta concentracion de proteinas |
| TWI593705B (zh) | 2011-12-28 | 2017-08-01 | Chugai Pharmaceutical Co Ltd | Humanized anti-epiregulin antibody and cancer therapeutic agent containing the antibody as an active ingredient |
| WO2013116287A1 (en) | 2012-01-31 | 2013-08-08 | Genentech, Inc. | Anti-ig-e m1' antibodies and methods using same |
| WO2013120973A1 (en) * | 2012-02-15 | 2013-08-22 | Institut National De La Sante Et De La Recherche Medicale (Inserm) | Method of producing high-affinity antibodies |
| WO2013151664A1 (en) | 2012-04-02 | 2013-10-10 | modeRNA Therapeutics | Modified polynucleotides for the production of proteins |
| US9283287B2 (en) | 2012-04-02 | 2016-03-15 | Moderna Therapeutics, Inc. | Modified polynucleotides for the production of nuclear proteins |
| US9572897B2 (en) | 2012-04-02 | 2017-02-21 | Modernatx, Inc. | Modified polynucleotides for the production of cytoplasmic and cytoskeletal proteins |
| US10501512B2 (en) | 2012-04-02 | 2019-12-10 | Modernatx, Inc. | Modified polynucleotides |
| SI2849723T1 (sl) | 2012-05-18 | 2018-09-28 | Genentech, Inc. | Formulacije z visoko koncentracijo monoklonskih protiteles |
| US9695244B2 (en) | 2012-06-01 | 2017-07-04 | Momenta Pharmaceuticals, Inc. | Methods related to denosumab |
| US20150140608A1 (en) * | 2012-06-01 | 2015-05-21 | Momenta Pharmaceuticals, Inc. | Methods related to omalizumab |
| WO2014018747A2 (en) | 2012-07-26 | 2014-01-30 | Momenta Pharmaceuticals, Inc. | Glycoproteins with anti-inflammatory properties |
| FR2994390B1 (fr) | 2012-08-10 | 2014-08-15 | Adocia | Procede d'abaissement de la viscosite de solutions de proteines a concentration elevee |
| US8613919B1 (en) | 2012-08-31 | 2013-12-24 | Bayer Healthcare, Llc | High concentration antibody and protein formulations |
| US9592297B2 (en) | 2012-08-31 | 2017-03-14 | Bayer Healthcare Llc | Antibody and protein formulations |
| WO2014041544A1 (en) * | 2012-09-12 | 2014-03-20 | Ramot At Tel-Aviv University Ltd. | Immunoparticles and methods of generating and using same |
| PT2922554T (pt) | 2012-11-26 | 2022-06-28 | Modernatx Inc | Arn modificado nas porções terminais |
| WO2014113510A1 (en) | 2013-01-15 | 2014-07-24 | Xencor, Inc. | Rapid clearance of antigen complexes using novel antibodies |
| US10450361B2 (en) | 2013-03-15 | 2019-10-22 | Momenta Pharmaceuticals, Inc. | Methods related to CTLA4-Fc fusion proteins |
| US8980864B2 (en) | 2013-03-15 | 2015-03-17 | Moderna Therapeutics, Inc. | Compositions and methods of altering cholesterol levels |
| ES2708759T3 (es) | 2013-05-13 | 2019-04-11 | Momenta Pharmaceuticals Inc | Procedimientos para el tratamiento de la neurodegeneración |
| KR101815265B1 (ko) | 2013-06-20 | 2018-01-04 | 한올바이오파마주식회사 | FcRn 특이적 인간 항체 및 이를 포함하는 자가면역 질환 치료용 조성물 |
| US10196458B2 (en) * | 2013-07-26 | 2019-02-05 | The Regents Of The University Of California | Anti-immunoglobulin E antibodies and methods of using thereof |
| MX2016001854A (es) | 2013-08-12 | 2016-09-06 | Genentech Inc | Composiciones y metodo para tratar condiciones asociadas con el complemento. |
| US10023626B2 (en) | 2013-09-30 | 2018-07-17 | Modernatx, Inc. | Polynucleotides encoding immune modulating polypeptides |
| KR20160067219A (ko) | 2013-10-03 | 2016-06-13 | 모더나 세라퓨틱스, 인코포레이티드 | 저밀도 지단백질 수용체를 암호화하는 폴리뉴클레오타이드 |
| EP3058084A4 (en) | 2013-10-16 | 2017-07-05 | Momenta Pharmaceuticals, Inc. | Sialylated glycoproteins |
| AP2016009222A0 (en) | 2013-11-04 | 2016-05-31 | Glenmark Pharmaceuticals Sa | Production of t cell retargeting hetero-dimeric immunoglobulins |
| CN105722539B (zh) | 2013-11-13 | 2021-01-15 | 豪夫迈·罗氏有限公司 | 辅助式手动注射装置和方法 |
| SG11201608868PA (en) | 2014-05-01 | 2016-11-29 | Genentech Inc | Anti-factor d antibody variants and uses thereof |
| SG11201607046VA (en) * | 2014-06-17 | 2016-10-28 | Academia Sinica | HUMANIZED ANTI-IgE ANTIBODIES THAT CROSSLINK CD23 ON B LYMPHOCYTES BUT DO NOT SENSITIZE MAST CELLS |
| CN106686977B (zh) | 2014-07-09 | 2022-03-25 | 豪夫迈·罗氏有限公司 | Ph调整以改善细胞库的解冻复苏 |
| US20160060360A1 (en) | 2014-07-24 | 2016-03-03 | Xencor, Inc. | Rapid clearance of antigen complexes using novel antibodies |
| US11773166B2 (en) | 2014-11-04 | 2023-10-03 | Ichnos Sciences SA | CD3/CD38 T cell retargeting hetero-dimeric immunoglobulins and methods of their production |
| JP6878301B2 (ja) | 2015-04-09 | 2021-05-26 | コーネル ユニヴァーシティー | アレルゲンに対する反応を予防するための遺伝子治療 |
| HK1251480A1 (zh) | 2015-09-21 | 2019-02-01 | Aptevo Research And Development Llc | Cd3结合多肽 |
| TW201730211A (zh) | 2015-10-30 | 2017-09-01 | 建南德克公司 | 抗因子d抗體及結合物 |
| JP2018536650A (ja) * | 2015-10-30 | 2018-12-13 | ジェネンテック, インコーポレイテッド | 抗d因子抗体変異体コンジュゲート及びその使用 |
| EP3484517B1 (en) | 2016-07-18 | 2025-07-02 | Ramot at Tel-Aviv University Ltd. | Modular platform for targeted therapeutics |
| JP7127859B2 (ja) * | 2016-11-09 | 2022-08-30 | ノース カロライナ ステート ユニバーシティ | キメラタンパク質を用いたアレルギー疾患の治療 |
| AU2017382281B2 (en) | 2016-12-22 | 2024-07-11 | Genentech, Inc. | Methods and formulations for reducing reconstitution time of lyophilized polypeptides |
| US10646569B2 (en) | 2017-05-16 | 2020-05-12 | Bhami's Research Laboratory, Pvt. Ltd. | High concentration protein formulations with reduced viscosity |
| BR112020002636A2 (pt) * | 2017-08-10 | 2020-07-28 | Grifols Diagnostic Solutions Inc. | composições, métodos e/ou kits que compreendem um domínio extracelular recombinante de cd38 humano |
| WO2019148405A1 (zh) * | 2018-02-01 | 2019-08-08 | 北京凯因科技股份有限公司 | IL-4Rα抗体及其用途 |
| KR20220098056A (ko) | 2018-02-09 | 2022-07-08 | 제넨테크, 인크. | 비만 세포 매개 염증성 질환에 대한 치료 및 진단 방법 |
| WO2019183437A1 (en) | 2018-03-23 | 2019-09-26 | North Carolina State University | Methods and compositions for antibody to high affinity receptor for ige |
| IL279782B2 (en) | 2018-07-03 | 2026-05-01 | Bristol Myers Squibb Co | Methods for producing recombinant proteins |
| WO2021250546A1 (en) | 2020-06-09 | 2021-12-16 | University Of Washington | Micrornas as predictors of response to anti-ige therapies in chronic spontaneous urticaria |
| EP4180454A4 (en) * | 2020-07-10 | 2024-10-02 | Shanghai Jemincare Pharmaceuticals Co., Ltd. | Anti-ige engineered antibody and application thereof |
| CN111879923A (zh) * | 2020-08-06 | 2020-11-03 | 深圳科隆生物新材料有限公司 | 一种可消除hama效应的试剂盒 |
| EP4305190A4 (en) | 2021-03-11 | 2025-03-26 | Iggenix, Inc. | METHODS AND SYSTEMS FOR PREDICTING AN ALLERGIC REACTION |
| CA3251445A1 (en) | 2022-06-29 | 2024-01-04 | Kashiv Biosciences, Llc | IMPROVED ANTIBODY ASSAY METHOD |
| US20250353928A1 (en) * | 2024-05-17 | 2025-11-20 | Excellergy, Inc. | Antibodies and antibody fragments that bind ige |
Family Cites Families (23)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4275149A (en) * | 1978-11-24 | 1981-06-23 | Syva Company | Macromolecular environment control in specific receptor assays |
| JPS6031471B2 (ja) * | 1978-07-21 | 1985-07-22 | 協和醗酵工業株式会社 | グリセロ−ル酸化酵素およびその製法 |
| US4816567A (en) * | 1983-04-08 | 1989-03-28 | Genentech, Inc. | Recombinant immunoglobin preparations |
| GB8607679D0 (en) * | 1986-03-27 | 1986-04-30 | Winter G P | Recombinant dna product |
| US5534617A (en) * | 1988-10-28 | 1996-07-09 | Genentech, Inc. | Human growth hormone variants having greater affinity for human growth hormone receptor at site 1 |
| SU1752763A1 (ru) * | 1990-04-10 | 1992-08-07 | Центральный научно-исследовательский рентгено-радиологический институт | Штамм гибридных культивируемых клеток животных MUS MUScULUS L. - продуцент моноклональных антител к I @ Е человека |
| DE69129154T2 (de) * | 1990-12-03 | 1998-08-20 | Genentech, Inc., South San Francisco, Calif. | Verfahren zur anreicherung von proteinvarianten mit geänderten bindungseigenschaften |
| WO1992017207A1 (en) | 1991-03-26 | 1992-10-15 | Tanox Biosystems, Inc. | MONOCLONAL ANTIBODIES WHICH BIND TO SECRETED AND MEMBRANE-BOUND IgE, BUT NOT TO IgE ON BASOPHILS |
| EP0590058B1 (en) * | 1991-06-14 | 2003-11-26 | Genentech, Inc. | HUMANIZED Heregulin ANTIBODy |
| WO1994004679A1 (en) * | 1991-06-14 | 1994-03-03 | Genentech, Inc. | Method for making humanized antibodies |
| US5965709A (en) * | 1991-08-14 | 1999-10-12 | Genentech, Inc. | IgE antagonists |
| US6329509B1 (en) * | 1991-08-14 | 2001-12-11 | Genentech, Inc. | Anti-IgE antibodies |
| EP1260521B1 (en) * | 1991-08-14 | 2007-11-21 | Genentech Inc. | Immunoglobulin variants for specific Fc epsilon receptors |
| DE69233528T2 (de) * | 1991-11-25 | 2006-03-16 | Enzon, Inc. | Verfahren zur Herstellung von multivalenten antigenbindenden Proteinen |
| CA2372813A1 (en) * | 1992-02-06 | 1993-08-19 | L.L. Houston | Biosynthetic binding protein for cancer marker |
| ATE228536T1 (de) | 1993-03-11 | 2002-12-15 | Tanox Biosystems Inc | Antigene epitope von ige repräsentierenden peptiden auf der b-zell-oberfläche aber nicht auf oberflächen von basophilen |
| US5597710A (en) * | 1994-03-10 | 1997-01-28 | Schering Corporation | Humanized monoclonal antibodies against human interleukin-4 |
| US5561053A (en) | 1994-08-05 | 1996-10-01 | Genentech, Inc. | Method for selecting high-expressing host cells |
| US5705154A (en) * | 1995-03-08 | 1998-01-06 | Schering Corporation | Humanized monoclonal antibodies against human interleukin-4 |
| US6037453A (en) * | 1995-03-15 | 2000-03-14 | Genentech, Inc. | Immunoglobulin variants |
| US6267958B1 (en) * | 1995-07-27 | 2001-07-31 | Genentech, Inc. | Protein formulation |
| HUP9901673A3 (en) * | 1995-08-17 | 2001-06-28 | Scil Biomedicals Gmbh | Anti-selectin antibodies for prevention of multiple organ failure and acute organ damage |
| US5994511A (en) * | 1997-07-02 | 1999-11-30 | Genentech, Inc. | Anti-IgE antibodies and methods of improving polypeptides |
-
1997
- 1997-07-02 US US08/887,352 patent/US5994511A/en not_active Expired - Lifetime
-
1998
- 1998-06-24 ZA ZA9805500A patent/ZA985500B/xx unknown
- 1998-06-30 SK SK1875-99A patent/SK284395B6/sk not_active IP Right Cessation
- 1998-06-30 CZ CZ0473599A patent/CZ300724B6/cs not_active IP Right Cessation
- 1998-06-30 IL IL13397398A patent/IL133973A0/xx active IP Right Grant
- 1998-06-30 BR BRPI9810654A patent/BRPI9810654C1/pt unknown
- 1998-06-30 NZ NZ501842A patent/NZ501842A/en not_active IP Right Cessation
- 1998-06-30 PT PT98932919T patent/PT996728E/pt unknown
- 1998-06-30 EP EP98932919A patent/EP0996728B1/en not_active Expired - Lifetime
- 1998-06-30 PL PL98338030A patent/PL194562B1/pl unknown
- 1998-06-30 AT AT98932919T patent/ATE253116T1/de active
- 1998-06-30 TR TR2000/00206T patent/TR200000206T2/xx unknown
- 1998-06-30 BR BRPI9810654-6A patent/BR9810654B8/pt not_active IP Right Cessation
- 1998-06-30 CN CNB988084317A patent/CN1260357C/zh not_active Expired - Lifetime
- 1998-06-30 KR KR1019997012606A patent/KR100547538B1/ko not_active Expired - Lifetime
- 1998-06-30 RU RU2000102666/13A patent/RU2242515C2/ru active
- 1998-06-30 AU AU82701/98A patent/AU741115B2/en not_active Expired
- 1998-06-30 CA CA2295540A patent/CA2295540C/en not_active Expired - Lifetime
- 1998-06-30 ES ES98932919T patent/ES2210778T3/es not_active Expired - Lifetime
- 1998-06-30 JP JP50726199A patent/JP4286327B2/ja not_active Expired - Lifetime
- 1998-06-30 WO PCT/US1998/013410 patent/WO1999001556A2/en not_active Ceased
- 1998-06-30 DK DK98932919T patent/DK0996728T3/da active
- 1998-06-30 HU HU0002474A patent/HU228845B1/hu unknown
- 1998-06-30 DE DE69819332T patent/DE69819332T2/de not_active Expired - Lifetime
- 1998-06-30 RO RO99-01403A patent/RO120848B1/ro unknown
- 1998-07-02 TW TW087110696A patent/TWI233946B/zh not_active IP Right Cessation
- 1998-07-02 AR ARP980103225A patent/AR013169A1/es active IP Right Grant
- 1998-09-08 TW TW087114927A patent/TW570976B/zh not_active IP Right Cessation
-
1999
- 1999-04-21 US US09/296,005 patent/US6290957B1/en not_active Expired - Lifetime
- 1999-12-23 IS IS5321A patent/IS2039B/is unknown
- 1999-12-29 NO NO19996551A patent/NO324992B1/no not_active IP Right Cessation
-
2000
- 2000-01-10 IL IL133973A patent/IL133973A/en not_active IP Right Cessation
-
2001
- 2001-08-01 US US09/920,171 patent/US6682735B2/en not_active Expired - Lifetime
-
2002
- 2002-04-01 US US10/113,996 patent/US6761889B2/en not_active Expired - Lifetime
-
2007
- 2007-03-21 AR ARP070101154A patent/AR060038A2/es not_active Application Discontinuation
-
2008
- 2008-06-10 JP JP2008151343A patent/JP4371248B2/ja not_active Expired - Lifetime
Cited By (9)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2013508740A (ja) * | 2009-10-26 | 2013-03-07 | ジェネンテック, インコーポレイテッド | 治療的抗IgE抗体に特異的な抗体を検出するためのアッセイ及びアナフィラキシーにおけるそれらの使用 |
| JP2013521772A (ja) * | 2010-03-11 | 2013-06-13 | ライナット ニューロサイエンス コーポレイション | pH依存性の抗原結合を有する抗体 |
| JP2019522470A (ja) * | 2016-06-10 | 2019-08-15 | ユーシービー バイオファルマ エスピーアールエル | 抗IgE抗体 |
| US11214627B2 (en) | 2016-06-10 | 2022-01-04 | UCB Biopharma SRL | Anti-IgE antibodies |
| JP7164439B2 (ja) | 2016-06-10 | 2022-11-01 | ユーシービー バイオファルマ エスアールエル | 抗IgE抗体 |
| JP2023021974A (ja) * | 2016-06-10 | 2023-02-14 | ユーシービー バイオファルマ エスアールエル | 抗IgE抗体 |
| US12054559B2 (en) | 2016-06-10 | 2024-08-06 | UCB Biopharma SRL | Anti-IgE antibodies |
| JP7612641B2 (ja) | 2016-06-10 | 2025-01-14 | ユーシービー バイオファルマ エスアールエル | 抗IgE抗体 |
| JP2025011170A (ja) * | 2016-06-10 | 2025-01-23 | ユーシービー バイオファルマ エスアールエル | 抗IgE抗体 |
Also Published As
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| JP4371248B2 (ja) | 改良抗IgE抗体及びポリペプチドの改良方法 | |
| US7157085B2 (en) | Method for treating IgE-mediated disorders | |
| US6632926B1 (en) | Antibody variants | |
| AU731817B2 (en) | Humanized anti-CD11a antibodies | |
| US6703018B2 (en) | Method of treatment using humanized anti-CD11a antibodies | |
| CN101210050B (zh) | 抗-血管内皮生长因子的抗体 | |
| JP2001509817A (ja) | 抗vegf抗体 | |
| US20040146507A1 (en) | Antibody mutants | |
| HK1027833B (en) | Improved anti-ige antibodies and methods of improving antibodies | |
| EP0946727B1 (en) | Antibody mutants | |
| EP1950300A2 (en) | Antibody variants with higher binding affinity compared to parent antibodies | |
| AU776365B2 (en) | Improved anti-IgE antibodies and method of improving polypeptides | |
| AU2008203527A1 (en) | Antibody variants with higher binding affinity compared to parent antibodies | |
| AU2004216585A1 (en) | Antibody variants with higher binding affinity compared to parent antibodies | |
| MXPA99004795A (en) | HUMANIZED ANTI-CD11a ANTIBODIES |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20090210 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20090508 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20090804 |
|
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20090825 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20120911 Year of fee payment: 3 |
|
| R150 | Certificate of patent or registration of utility model |
Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20130911 Year of fee payment: 4 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| R250 | Receipt of annual fees |
Free format text: JAPANESE INTERMEDIATE CODE: R250 |
|
| EXPY | Cancellation because of completion of term |