JP3920573B2 - トランスフェリン受容体様蛋白質をコードする核酸、及びその関連産物 - Google Patents
トランスフェリン受容体様蛋白質をコードする核酸、及びその関連産物 Download PDFInfo
- Publication number
- JP3920573B2 JP3920573B2 JP2000581051A JP2000581051A JP3920573B2 JP 3920573 B2 JP3920573 B2 JP 3920573B2 JP 2000581051 A JP2000581051 A JP 2000581051A JP 2000581051 A JP2000581051 A JP 2000581051A JP 3920573 B2 JP3920573 B2 JP 3920573B2
- Authority
- JP
- Japan
- Prior art keywords
- tfr2
- nucleic acid
- antibody
- cell
- acid sequence
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Fee Related
Links
Images






Classifications
-
- G—PHYSICS
- G01—MEASURING; TESTING
- G01N—INVESTIGATING OR ANALYSING MATERIALS BY DETERMINING THEIR CHEMICAL OR PHYSICAL PROPERTIES
- G01N33/00—Investigating or analysing materials by specific methods not covered by groups G01N1/00 - G01N31/00
- G01N33/48—Biological material, e.g. blood, urine; Haemocytometers
- G01N33/50—Chemical analysis of biological material, e.g. blood, urine; Testing involving biospecific ligand binding methods; Immunological testing
- G01N33/53—Immunoassay; Biospecific binding assay; Materials therefor
- G01N33/575—Immunoassay; Biospecific binding assay; Materials therefor for cancer
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P25/00—Drugs for disorders of the nervous system
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P35/00—Antineoplastic agents
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P35/00—Antineoplastic agents
- A61P35/02—Antineoplastic agents specific for leukemia
-
- A—HUMAN NECESSITIES
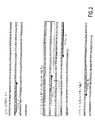
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P43/00—Drugs for specific purposes, not provided for in groups A61P1/00-A61P41/00
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/705—Receptors; Cell surface antigens; Cell surface determinants
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/705—Receptors; Cell surface antigens; Cell surface determinants
- C07K14/70582—CD71
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
-
- G—PHYSICS
- G01—MEASURING; TESTING
- G01N—INVESTIGATING OR ANALYSING MATERIALS BY DETERMINING THEIR CHEMICAL OR PHYSICAL PROPERTIES
- G01N2500/00—Screening for compounds of potential therapeutic value
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Organic Chemistry (AREA)
- Medicinal Chemistry (AREA)
- Immunology (AREA)
- General Health & Medical Sciences (AREA)
- Molecular Biology (AREA)
- Engineering & Computer Science (AREA)
- Biochemistry (AREA)
- Cell Biology (AREA)
- Hematology (AREA)
- Biomedical Technology (AREA)
- Animal Behavior & Ethology (AREA)
- Urology & Nephrology (AREA)
- Public Health (AREA)
- Veterinary Medicine (AREA)
- Pharmacology & Pharmacy (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Toxicology (AREA)
- Zoology (AREA)
- Gastroenterology & Hepatology (AREA)
- General Chemical & Material Sciences (AREA)
- Biophysics (AREA)
- Genetics & Genomics (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Analytical Chemistry (AREA)
- General Physics & Mathematics (AREA)
- Pathology (AREA)
- Biotechnology (AREA)
- Microbiology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Food Science & Technology (AREA)
- Physics & Mathematics (AREA)
- Oncology (AREA)
- Neurology (AREA)
- Neurosurgery (AREA)
- Peptides Or Proteins (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
Description
【発明の属する技術分野】
本発明は、概してトランスフェリン受容体様ファミリーに関し、特にはトランスフェリン受容体様蛋白質をコードする核酸、及びその関連産物に関する。
本発明は、(米国)国立保険研究所(National Institute of Health)の助成金番号CA 26038-20の補助を受けてなされたものである。
本出願は、1998年11月6日に出願された仮出願番号60/107,502の利益を権利請求するものであり、この仮出願の内容を参照することにより本願に組み込む。
【0002】
【従来の技術】
本願を通じて、種々の文献を括弧付けで引用する。これらの刊行物の開示事項はその全てを参照することにより本願に組み込み、本発明が関係する技術水準をより完全に記載する。これらの参考文献の完全な文献目録は、この出願書類の後半部にある。また、略語は以下の通りである:TfR、トランスフェリン受容体;RT−PCR、逆転写酵素−PCR;Tf、トランスフェリン;PSMA、前立腺特異的膜抗原;RACE、cDNA末端の迅速増幅;G3PDH、グリセルアルデヒド-3-リン酸デヒドロゲナーゼ;UTR、非翻訳領域;IRE、鉄−応答性エレメント;IRP、鉄制御蛋白質。
【0003】
トランスフェリン受容体(TfR)は、細胞による鉄の取り込みに関与する重要な分子である(1、2)。細胞膜上では、このTfRホモ二量体が二つのジ第二鉄トランスフェリン(diferric transferrin)(Tf)分子に結合して、当該複合体の内部移行が生じる。細胞質内では、鉄は種々の蛋白質(ヘム、アコニターゼ、チトクローム(3)、及びリボ核酸還元酵素(4)を含む)により放出されて補助因子をして利用されされるか、又はフェリチン分子内に保存されることもある。分裂する細胞では、分裂していない細胞以上の鉄が必要であるので、TfRの発現は、迅速に分裂している細胞内では通常は高く(5)、例えば造血前駆細胞においてはそうである(6)。またTfRの発現は、その正常な細胞対応物と比較すると腫瘍細胞内では高くなっている(7)。ジ第二鉄Tfの、TfRに対する親和性は、HFEにより調節される(8、9)。
【0004】
TfRの他の相同物で唯一あるものは、PSMAであるが、これはマウスNAAG−ペプチダーゼのヒトの相同物である(10、11)。前立腺癌においてはPSMAの発現は高いので、PSMAに対する抗体が、前立腺癌の転移を検出するための映像化剤(imaging agent)として使用するために認可されている(12)。PSMAの機能は、TfRのものとは顕著に異なっていることが分かっているが、これはそれらの細胞外ドメインの間で類似性が中程度であることに反する。PSMAは、エンドサイトーシスを仲介せず、また、グルタミル−カルボキシペプチダーゼ活性を有する(11、13)。
【0005】
【発明が解決しようとする課題】
細胞の鉄の取り込みプロセスにおけるトランスフェリン受容体の重要性に鑑み、トランスフェリン受容体に対して相同性を有し、トランスフェリン受容体様機能を発揮する潜在的な分子を同定することが望まれる。当該分子の同定により、特定の細胞における鉄の取り込みを変化させるのに有用なツールが提供されるかもしれない。更に、同定された新規の受容体を使用して、他の金属、又は細胞の生命維持に必要な種々のキーとなる蛋白質とともに活性を有する新規のリガンドを同定することもできるかもしれない。更には、TfRの発現は腫瘍細胞においては高いので、新規に同定された受容体を使用して腫瘍細胞の診断又は治療を行うことができるかもしれない。
本発明の目的は、潜在的なトランスフェリン受容体様蛋白質を同定することである。更に、新規に発見された受容体の、細胞での鉄の代謝における役割を調査することもまた本発明の目的である。
【0006】
【課題を解決するための手段】
従って本発明は、新規のトランスフェリン受容体様(TfR2)ポリペプチドをコードする単離された核酸、又はその断片、及びこれらによりコードされた単離されたTfR2ポリペプチドを提供する。更に、本発明の核酸を含むベクター、これで形質転換した宿主細胞、それに対してアンチセンスなオリゴヌクレオチド、及び本発明のポリペプチドに特異的に結合する抗体を含む組成物も提供される。細胞においてTfR2を検出する方法も提供される。
本発明は、その完全な範囲を特許請求の範囲に定義しており、また、以下の好ましい態様において記載されている。
【0007】
【発明の実施の形態】
本発明に関し、上記の及びその他の特徴、並びにそれらを得る方法は、以下の記載を、添付の図面とともに参照することにより明快になるであろうし、また、最もよく理解されるであろう。これらの図面は、本発明の典型的な態様を描画するだけであり、従って、その範囲を限定するものではない。これらは以下のように、特異性と詳細さを与えるためのものである。
本発明は、トランスフェリン受容体(TfR)に相同性のヒトの遺伝子の発見及びそのクローニングに基づいている。本発明の目的のため、この遺伝子はTfR2遺伝子と呼ぶ。TfR2遺伝子は、クローニングされ、配列決定され、そして染色体7q22にマッピングされている。この遺伝子から発現される二つの転写産物が同定されたが、それらはα転写産物(約2.9kb)及びβ(約2.5kb)転写産物である。それぞれの転写産物の推定のアミノ酸配列は、TfR2蛋白質が膜結合型及び細胞内型の両方の形態で発現する可能性を予測している。TfR2−α蛋白質のこの推定のアミノ酸配列は、II型の膜蛋白質であり、TfRと45%の相同性を有し、その細胞外ドメインとは66%の相同性を有している。TfR2−β蛋白質は、推定の経膜ドメインが含まれているTfR2−αのアミノ末端蛋白質を欠失している。FLAGタグ付TfR2−αでTfR欠失細胞を形質転換すると、ビオチン化トランスフェリン(Tf)の細胞表面への結合が増大することが示された。更に、これらの形質転換した細胞では、Tf−結合型の55Feの取り込みが顕著に増大した。
【0008】
従って本発明は、TfR2ポリペプチドをコードする単離された核酸を提供する。このような核酸は、例えばヒトの染色体7q22より得ることができる。この染色体領域の欠失又はヘテロ接合性の喪失が、複数の悪性疾患においては報告されているが、これらには脊髄形成異常症(myelodisplastic syndromes)、急性骨髄性白血病、並びに、乳癌、卵巣癌、すい臓癌が含まれる。この核酸はまた、ヒトのcDNAライブラリー、例えばHL60 cDNAライブラリーやTF−1 cDNAライブラリーから得ることができるが、これらには限定されない。
【0009】
「核酸」という用語(ポリヌクレオチドとも呼ばれる)は、デオキシリボ核酸又はリボ核酸であって、より大きい構築物の独立の断片又はその成分の形態をとるものを意味する。本発明のポリペプチドをコードするDNAは、組換え転写ユニット中において発現することが可能な合成遺伝子を提供する、オリゴヌクレオチド又はcDNA断片より組み立てることができる。本発明のポリヌクレオチド配列には、DNA、RNA、及びcDNAの配列が含まれる。本発明の一の態様によれば、核酸は配列番号:1(図12を参照)に定義されるアミノ酸配列を有するポリペプチドをコードする。本発明の別の態様によれば、核酸は、配列番号:2又は配列番号:3(それぞれ、図13及び14)に定義されるヌクレオチドと実質的に同じヌクレオチドを有する核酸を含むが、これには限定されない。好ましい態様によれば、本発明の核酸には、配列番号:2又は3に定義されるのと同じヌクレオチド配列が含まれる。本願では「実質的に同じヌクレオチド」という語句は、参照用のポリヌクレオチドとの十分な相同性を有し、それが当該参照用ヌクレオチドに典型的な中程度の厳密度条件下でハイブリダイズするDNAを意味する。参照用のヌクレオチド配列と「実質的に同じヌクレオチド配列」を有するDNAは、当該参照用ヌクレオチドの配列と少なくとも60%の相同性を有する。
【0010】
本願では、「単離された」という語句は、天然には生じない形態にある核酸を意味する。本発明のDNAの配列は、複数の方法により得ることができる。例えばDNAは、当該技術分野で周知のハイブリダイゼーション法により単離することができる。これらには1)ゲノム又はcDNAのライブラリーをプローブとハイブリダイズして、相同性のヌクレオチド配列を検出するもの、2)興味あるDNA配列にアニーリングすることができるプライマーを使用して、ゲノムDNA又はcDNAについてPCRを行うもの、そして3)発現ライブラリーの抗体スクリーニングを行って、共通の構造的特徴を有する、クローニングされたDNA断片を検出するものが含まれるが、これらには限定されない。
【0011】
好ましくは本発明のポリヌクレオチドは、ほ乳類の生物に由来し、最も好ましくはマウス、ラット、又はヒトに由来する。核酸のハイブリダイゼーションに依存するスクリーニング方法により、どのような生物からのどのような遺伝子配列も単離することが可能になるが、これは適切なプローブが入手可能であることを前提にする。オリゴヌクレオチドプローブは、問題としている蛋白質をコードする配列の一部に対応するものであるが、これは化学的に合成することができる。これには、アミノ酸配列の短いオリゴペプチド部分が既知である必要がある。蛋白質をコードするDNA配列は、遺伝コードより推定することができるが、このコードの縮退性を考慮に入れる必要がある。配列が縮退している場合には、混合型の添加反応を行うことができる。これには、変性した二本鎖DNAの不均一な混合物が含まれる。このようなスクリーニングの場合には、ハイブリダイゼーションは好ましくは一本鎖DNA又は変性済の二本鎖DNA上で行われる。ハイブリダイゼーションは、興味あるポリペプチドに関係するmRNA配列の量が極めて少なくしか存在していない供給源に由来するcDNAを検出するのに特に有益である。言い換えれば、非特異的な結合を避けるために、厳密なハイブリダイゼーション条件を使用することにより、例えば標的DNAをその完全な相補性にある、混合物中の単一プローブにハイブリダイゼーションさせることによって、特定のcDNAをオートラジオグラフィーで視覚化させることができる(Wallace et al., Nucl. Acid Res., 9:879, 1981)。
【0012】
本発明の特定のDNA配列はまた、1)ゲノムDNAから二本鎖DNA配列を単離すること、2)化学的にDNA配列を製造して、興味あるポリペプチドの必要なコドンを提供すること、そして3)真核ドナー細胞から単離したmRNAの逆転写により二本鎖DNA配列をin vitroで合成すること、により得ることもできる。最後の場合、二本鎖DNA配列は真核ドナー細胞から単離されたmRNAの逆転写によるものであり、一般にはcDNAと呼ばれる、mRNAの二本鎖DNA相補鎖が、結果的に形成される。組換えにおいて使用する特定のDNA配列を開発するための上記の3つの方法のうち、ゲノムDNAの単離物を単離するものは最も稀である。これはイントロンの存在のために、ほ乳類のポリペプチドを細菌的に発現することが望ましい場合にはそのとおりである。DNA配列を合成することは、所望のポリペプチド産物のアミノ酸配列の全配列が既知である場合には頻繁にとられる方法である。所望のポリペプチドのアミノ酸配列の全配列がわからない場合には、DNA配列を直接的に合成することは可能ではなく、cDNA配列を合成する方法をとらざるを得ない。興味あるcDNA配列を単離するための標準的な方法の中には、mRNAの逆転写に由来するcDNAライブラリーを有するプラスミド又はファージを形成するものがあるが、ここで、そのmRNAは遺伝的発現が高レベルにあるドナー細胞内で豊富に存在している。PCR法と組み合わせて使用する場合、稀な発現産物までもがクローニングされる。ポリペプチドのアミノ酸配列のかなりの部分が既知であるものの場合、一本鎖の形態に変性しておいたcDNAのクローン化コピー上で行われるDNA/DNAハイブリダイゼーション法においては、標的cDNA中に存在することが推定される配列を複製する、標識化された一本鎖又は二本鎖DNAプローブ又はRNAプローブを使用することができる(Jay, et al., Nucl. Acid. Res., 11:2325, 1983)。
【0013】
TfR2ポリペプチドをコードするDNA配列は、in vitroで適切な宿主細胞へDNA転移して発現することができる。「宿主細胞」は、その中でベクターが増殖してそのDNAが発現される細胞である。この用語にはまた、対象の宿主細胞のいずれの子孫もが含まれる。全ての子孫は、親の細胞には同一でないかもしれないと理解されているが、これは複製中に変異が生じる可能性があるためである。しかしながら、「宿主細胞」の用語が使用される場合、このような子孫も含まれる。安定な転移の方法は、外来性DNAが連続的に宿主内で維持されることを意味するが、これは当該技術分野では既知である。
【0014】
本発明においては、ポリヌクレオチド配列は、組換え発現ベクター中に挿入することができる。「組換え発現ベクター」という用語は、プラスミド、ウイルスや、当該技術分野で既知の他のビヒクルであって、TfR2遺伝子配列の編入物(incorporation)の挿入により操作しておいたものを意味する。このような発現ベクターには、宿主に挿入された遺伝子配列の効果的な転写を容易にするプロモーター配列が含まれている。発現ベクターは典型的には、複製起点、プロモーターや、形質転換細胞の表現系選択を可能にする特定の遺伝子を含んでいる。本発明において使用するのに適するベクターには、T7ベースの細菌内発現用の発現ベクター(Rosenberg, et al., Gene, 56:125, 1987)、ほ乳類細胞内での発現用のpMSXND発現ベクター(Lee and Nathans, J. Biol. Chem., 263:3521, 1988)、及び昆虫細胞内での発現用のバキュロルイルス誘導ベクター、が含まれるがこれらには限定されない。DNA断片は、制御配列、例えばプロモーター(T7プロモーター、メタルチオネインプロモーター、ポリヘドリンプロモーター等)に作動的に連結したベクター内に存在することができる。
【0015】
TfR2をコードするポリヌクレオチド配列は、原核細胞又は真核細胞の何れかで発現させることができる。宿主には、細菌、酵母、昆虫、ほ乳類、の生物を含めることができる。真核性、又はウイルス性の配列を有するDNAを、原核細胞内で発現させる方法は、当該技術分野において周知である。生物学的に機能性のウイルスDNAベクター又はプラスミドDNAベクターであって、宿主において発現・複製することが可能なものが、当該技術分野において既知である。このようなベクターを使用して、本発明のDNA配列を組み込む。
【0016】
宿主細胞を組換えDNAで形質転換することは、当該技術分野において当業者らに周知の通常の方法により行うことができる。宿主が原核細胞、例えば大腸菌(E.coli)である場合、DNA取り込みが可能なコンピテント細胞は、対数増殖期後に回収されて、引き続いて当該技術分野で周知の方法を使用してCaCl2法で処理された細胞より調製することができる。或いは、MgCl2又はRBClを使用することができる。形質転換はまた、望まれる場合には、宿主細胞のプロトプラストを形成した後に行うこともできる。
【0017】
宿主が真核細胞である場合、リン酸カルシウム共沈殿法や、ミクロインジェクション法等の通常の機械的方法、エレクトロポレーション法、リポソーム内に包まれたプラスミドの挿入や、ウイルスベクター等のDNAの形質移入法を使用することができる。真核細胞はまた、本発明のTfR2のDNA配列、及び選択可能な表現系をコードする別の外来性DNA分子(例えば単純ヘルペスのチミジンキナーゼ遺伝子)で共形質転換することもできる。別の方法では、例えばシミアンウイルス40(SV40)やウシパピローマウイルス等の真核ウイルスベクターを使用して、真核細胞を一過的に、感染又は形質転換して、当該蛋白質を発現させている(例えば、Eukaryotic Viral Vectors, Cold Spring Harbor Laboratory, Gluzman ed. 1982)。
本発明により提供される、細菌で発現したポリペプチド又はその断片の単離及び精製は、分離用クロマトグラフィー、モノクローナル抗体又はポリクローナル抗体を使用する免疫学的分離法を含む通常の方法により行うことができる。
【0018】
本発明の別の態様は、単離されたTfR2ポリペプチド、又はその断片、及びその機能的等価物を提供する。本願では、「単離された」という用語は、蛋白質分子であって、細胞成分、及び/又はin vivo環境下での天然物には通常結合している汚染物を含まないもの、を意味する。本発明のポリペプチドには、単離された、天然の対立遺伝子変異体、並びにその組換え体のいずれのものも含まれる。
【0019】
本発明のペプチドの主要なアミノ酸にマイナーな変化を生じさせることにより、本願の特定のペプチドと比較して実質的に同等の活性を有するペプチドが生じる。このような修飾は、部位特異的突然変異導入による意図的なものや、自発的なものとすることができる。また、この修飾は本発明のペプチドの長さに対して行うこともできる。当業者ならば、本発明のペプチドよりも長いか又は短いペプチドが、実質的に本発明のペプチドと同じ機能を保持することが可能であることがわかる。これらの修飾により産生される全てのペプチドは、当該ペプチドの生物学的活性が失われていない限り、本願に含まれる。
【0020】
本発明のポリペプチドは、当業者に周知の種々の方法を使用して単離することができる。本発明のポリペプチドの単離及び精製に用いられる方法には、沈殿、ゲルろ過、イオン交換クロマトグラフィー、又は逆相及びアフィニティークロマトグラフィーが含まれる。他の周知の方法は、DuetscherらのGuide to Protein Purification: Methods in Enzymology, Vol. 182(Academic Press, (1990))に記載されているが、これを参照することにより本願に組み込む。或いは、本発明の単離されたポリペプチドは、例えば実施例に記載された周知の組換え法を使用して得ることもできる。
【0021】
本発明のポリペプチドを調製する手段の例は、TfR2をコードする核酸を、上記の適切な宿主細胞内で発現することである。本発明のポリペプチドは、予め発現ベクターで形質転換しておいた細胞より直接的に単離することができる。このポリペプチド、生物学的に活性な断片、及びその機能的等価物は、化学的合成によっても産生することができる。例えば、合成のポリペプチドは、Applied Biosystems社のモデル430A、又は431Aの自動ペプチド合成機(Forester City, CA) であって、製造者提供の化学を利用しているものにより製造することができる。
【0022】
本願では、「TfR2」とは、実質的に純粋な天然のTfR2蛋白質、又は組換え発現/産生された蛋白質を意味し、これにはmRNAによりコードされ、主要な転写産物のオルタナティブなスプライシングにより産生されるその変異体が含まれ、更にはその断片であって、天然の生物学的活性を保持しているものも含まれる。本発明の好ましいポリペプチドは、配列番号:1(図12)に定義されるものと実質的に同じアミノ酸配列を有するものである。本発明の一の態様によれば、本発明の単離されたTfR2ポリペプチドは、少なくとも配列番号:2又は配列番号:3のヌクレオチド(それぞれ図13、及び14)によりコードされている。本発明の一の態様によれば、FLAGのタグ付きTfR2−α蛋白質は、還元条件下で約105kDaであり、非還元条件下では約215kDaである。本発明のポリペプチドを使用して、トランスフェリン受容体のリガンドを単離することができる。
【0023】
本発明の別の態様においては、本発明のペプチドに免疫反応又は結合する抗体が提供される。異なるエピトープ特異性を有する、プールされたモノクローナル抗体を必須としてなる抗体、並びに別個のモノクローナル抗体調製物が提供される。モノクローナル抗体は、抗原を含んだ本発明のペプチド又はその断片より、当該技術分野で周知の方法により調製される(Kohler et al., Nature, 256:495, 1975; Current Protocols in Molecular Biology, Ausubel et al., ed., 1989)。
【0024】
本発明のペプチド又は本発明のペプチドが提示するTfR2の領域に結合する抗体は、興味ある、ペプチドを含む断片又は無傷のポリペプチドを免疫用抗原として使用して調製することができる。動物を免疫するのに使用したポリペプチド又はペプチド、例えば配列番号:1のものは、翻訳されたcDNA又は化学的な合成物に由来させることができ、必要であれば精製されてキャリア蛋白質に共役される。このような通常用いられるキャリアは化学的にペプチドにカップリングされるものであるが、これにはキーホールリンペットヘモシアニン(KLH)、サイログロブリン、ウシ血清アルブミン(BSA)、及び破傷風トキソイドが含まれる。次いでカップリングされたペプチドを使用して、動物(例えばマウス、ラットやウサギ)を免疫する。
所望ならば、ポリクローナル抗体を更に精製するが、例えば抗体を生じさせたポリペプチド又はペプチドが結合したマトリックスに結合及び溶出させることにより行う。当業者ならば、モノクローナル抗体のみならず、ポリクローナル抗体の精製及び/又は濃縮についての免疫学的技術において通常の種々の方法を知っているであろう(例えばColigan, et al., Unit 9, Current Protocols in Immunology, Wiley Interscience, 1991,参照することにより本願に組み込む)。
【0025】
本願で使用される「抗体」という用語には、無傷の分子並びにその断片、例えばFab、Fab’2、及びFvが含まれるが、これらはエピトープ性の決定基に結合することができるものである。これらの抗体断片には、対応する抗原又は受容体に選択的に結合する能力の一部が保持されているが、以下のように定義される:
(1)Fabは、抗体分子の一価の抗原結合性断片であるが、これは抗体全体をパパイン酵素で消化して無傷の軽鎖及び一の重鎖の一部を生じさせることにより調製することができる。
(2)Fab’2は、抗体分子の断片であるが、これは抗体全体をペプシン酵素で消化し、次に還元して無傷の軽鎖及び重鎖の一部を生じさせることにより調製することができる。抗体分子当たり、二つのFab’断片が得られる。
(3)Fab’2は、抗体の断片であって、抗体全体をその後に還元することなくペプシン酵素で消化することにより得ることができる。Fab’2は、ジスルフィド結合で保持された二つのFab’断片の二量体である。
(4)Fvは、遺伝子工学的に調製された断片であって、二の鎖として発現された、重鎖の種々の領域及び軽鎖の種々の領域を含むものである。
(5)単一鎖抗体(SCA)は、遺伝子工学的に調製された分子であって、軽鎖の種々の領域及び重鎖の種々の領域を含み、これらが適切なポリペプチドリンカーにより連結されて融合された単一鎖分子となるものである。
これらの断片を調製する方法は、当該技術分野において既知である(例えば、Harlow and Lane, Antibodies: A Laboratory Manual, Cold Spring Harbor Laboratory, New York (1988)を参照されたし;これは参照することにより本願に組み込む)。
【0026】
本願では、「決定基」という用語は、抗体のパラトープが結合する、いずれの抗原性決定基又は抗原をも意味する。エピトープ決定基は通常、化学的に活性な、分子の表面の基、例えばアミノ酸や糖の側鎖からなり、通常は特定の三次元構造、並びに特定の電化的特徴を有している。
抗−イディオタイプの技術を用いて、エピトープを模倣するモノクローナル抗体を調製することも可能である。例えば、一のモノクローナル抗体に対して調製された抗−イディオタイプモノクローナル抗体は、当該一のモノクローナル抗体が結合したエピトープの「彫像(イメージ)」である、超可変領域内の結合ドメインを有するであろう。したがって本発明においては、例えば配列番号:1の合成ペプチドに結合する抗体より調製された抗−イディオタイプ抗体は、細胞内の鉄の代謝に要求されるTfR2の部位に対する競合性阻害因子として作用することができる。
【0027】
本発明の抗体を使用して、本発明のポリペプチドを単離することもできる。更に、この抗体は、本発明のポリペプチドの存在を検出するのに有益であり、また、染色体位置、並びに構造的及び機能的ドメインの分析にも有益である。
従って、本発明の別の態様は、細胞の表面にある本発明のポリペプチドの存在を検出するための方法を提供する。この方法は、TfR2ポリペプチドに結合する抗体と細胞とを、当該抗体が当該ポリペプチドに結合するのを許容するような条件下で接触させ、当該細胞に結合した当該抗体の存在を検出し、これによって本発明のTfR2ポリペプチドが当該細胞表面に存在することを検出することを含むものである。このようなポリペプチドの検出については、この抗体をin vitroの診断又はin vitroの映像化方法に使用することができる。
【0028】
試料中の標的TfR2ポリペプチドをin vitroで検出するのに有益な免疫学的方法には、検出可能な抗体を用いる免疫アッセイが含まれるが、この免疫アッセイには例えば、ELISA、パンデックスミクロ蛍光アッセイ(Pandex microfluorometry assay)、凝集化アッセイ、フローサイトメトリー、血清診断アッセイ、及び免疫組織染色法等の、当該技術分野で周知の方法がある。抗体は当該技術分野で周知の種々の方法により調製することができる。例えば、検出可能な標識を、抗体に直接的又は間接的に付着させることができるが、有益な標識には例えば、放射性ヌクレオチド、酵素、蛍光団、発色団、化学蛍光標識等が含まれる。
【0029】
更に本発明の抗体を使用して、生きている動物、生きているヒト、又はこれらより単離された生物学的組織や液体におけるTfR2ポリペプチドの活性を調節することができる。従って、本発明はキャリア及びTfR2ポリペプチドに対する天然のリガンドの結合を阻害するのに十分な量の、TfR2ポリペプチドへの特異性を有する抗体を含む組成物を提供する。
【0030】
本発明の別の態様は、TfR2ポリペプチドをコードするmRNAの何れかの部分に、当該mRNAの翻訳を防止又は阻害するようにして特異的に結合して、TfR2ポリペプチドのmRNAの翻訳を阻害することができるアンチセンスオリゴヌクレオチドを提供する。このアンチセンスオリゴヌクレオチドは、TfR2ポリペプチドをコードするcDNAの何れかの配列部分に対して特異的に結合することができる配列を有していてもよい。本願では、「結合特異性」という語句には、核酸配列がその相補的塩基対間での水素結合を形成することにより、それと二重らせんの部分を形成する能力が包含される。アンチセンスオリゴヌクレオチドの例は、ヌクレオチドの化学的類縁体を含むアンチセンスオリゴヌクレオチドである。
【0031】
本発明によれば、細胞膜を通過し、TfR2ポリペプチドをコードするmRNAに特異的に結合して翻訳を防止することにより、TfR2ポリペプチドの発現を低減するのに有効な、上記のアンチセンスオリゴヌクレオチドの一定量と、許容される疎水性のキャリアであって、細胞膜を通過することができるものとを含む組成物が提供される。このアンチセンスオリゴヌクレオチドの組成物は、TfR2ポリペプチドをコードするmRNAの翻訳を阻害するのに有益である。本発明の一の態様によれば、本発明のアンチセンスを含むキットであって、TfR2ポリペプチドの発現を阻害するためのものもまた提供される。本発明の別の態様によれば、当該組成物を使用して、TfR2ポリペプチドの発現レベルを調節することが可能である。
【0032】
本発明はまた、許容されるキャリア、及び単離され、精製されたTfR2ポリペプチド、その活性断片、又は精製された、天然の蛋白質及びその活性断片の何れかを、単独で、又は組み合わせで含んだ組成物をも提供する。これらのポリペプチド又は蛋白質は、組換え由来のもの、化学的に合成されたもの、又は天然の供給源より精製されたものとすることができる。本願では、「許容されるキャリア」という用語は、標準的な薬学的キャリアのいずれをも包含するが、これにはリン酸緩衝済生理食塩水、水や、油/水型、又は水/油型のエマルジョン等のエマルジョン、そして種々のタイプの湿潤剤等がある。
【0033】
【実施例】
(実験方法)
細胞株:HL−60、KG−1、U937(骨髄性白血病);TF−1、K562(赤白血病);Jurkat、Moltー4(T細胞白血病);Raji(バーキットリンパ腫);LNCaP、PC−3(前立腺癌);MCF−7、MDA−MB−231(乳癌);IMR−32(神経芽腫);SK−Hep1(肝癌);HepG2(肝芽腫);U−2OS(骨肉腫)及びSW480(大腸癌)。これらの細胞株は、Americal Type Culture Collection(ATCC, Manassas, VA)より入手した。ML−1、NB4、及びKasumi3(骨髄性白血病)、並びにCHO−TRVb(TfR欠損チャイニーズハムスター卵巣)及びTRVb−1(ヒトTfR安定形質移入済TRVb)の細胞は、それぞれMinowada博士(14)、Lanotte博士(15)、Asou 博士(16)、及びMcGraw博士(17)より提供していただいたものである。ヒトの単球は、健常なボランティアの血液を、Ficoll−Paque(Pharmasia, Piscataway, NJ)の勾配中で、400×gで30分間、遠心分離して単離した。これらの患者についてはインフォームドコンセントを実施した。
【0034】
cDNA及びゲノムDNAの分子クローニング:相補的DNAライブラリーは、商業的キット(Marathon cDNA Amplication Kit, Clontech, PaloAlto, CA)を利用してTF−1及びHL60細胞より構築し、5’及び3’RACE反応に使用して完全長のcDNAクローンを得た。プライマーA及びB(表1を参照)をそれぞれ5’及び3’RACEに使用した。RACE反応の産物をpGEM−Teasyベクター(Promega, Madison, WI)へサブクローニングした。TF−1及びHL60のcDNAライブラリーのそれぞれより、2.9kb(α)及び2.5kb(β)の二つの転写産物を単離した。
【0035】
TfR2用のプライマー配列
これらのプライマーを、RACE分析及びRT−PCR分析において使用して、TfR2cDNAを増幅した。これらのプライマーの一は、TfR2−α−転写産物(GenBankアクセス番号AF067864)の配列内でのヌクレオチド数で示してある。更に、プライマーA、C、D、及びEの一も図2に示してある。
【0036】
【表1】

ゲノムDNAは、ヒトのゲノムライブラリー(Lambda FIX II Library, Stratagene, LaJolla, CA)より、TfR2cDNAの3’末端の2.2kbの断片をプローブ(図1においてプローブ−1として示されている)として使用して単離した。制限酵素地図の作成後、3.85kbの断片であってエクソン4−6を含むものを、pBluescriptII(+)プラスミド(Stratagene)内へサブクローニングした(図1)。相補鎖DNA配列及びゲノム配列は、ABI Prism373自動配列決定機(Perkin-Elmer, Foster City, CA)を使用して決定した。
【0038】
染色体地図:GenBridge4放射性ハイブリッドパネル、RHO2(Reserch Genetics, Huntsville, AL)を使用して、TfR2遺伝子の位置を、既に報告されているようにして(18)決定した。プライマーA及びCにより、エクソン4に位置する178bpの断片が増幅された(図2)。PCR産物を1.5%のアガロースゲルで電気泳動にかけ、サザンブロットし、32Pで標識したTfR2(β型cDNAの5’部分の1kbpの断片;図1においてプローブ−2として表示)のプローブでハイブリダイズして、当該遺伝子を含有するハイブリッドを同定した。結果は、ウェブサイト:http://www.genome.wi.edu/cgi-bin/contig/rhmapper.pl.のデータベースにアクセスして分析した。
【0039】
ノーザンブロット及びRT−PCR分析
ノーザンブロット分析及びRT−PCR分析を、既に報告されている方法(18)を一部改編して行った。ヒトの組織のノーザンブロットのメンブレン及びcDNAは、OriGene(Rockville, MD)より購入した。ノーザンブロットの分析には、二つのTfR2cDNA断片(図1に示されるプローブ−1及びプローブ−2)、一のヒトβアクチンcDNA断片(OriGene)、及び約300bpのTfRcDNA断片をプローブとして使用した。RT−PCRには、α型特異的プライマー(プライマーA及びD)、β型特異的プライマー(プライマーC及びE)を使用した(表1及び図2)。増幅の条件は、94°C、30秒;56°C、40秒;及び72°C1分を35サイクルとした。対照として、グリセルアルデヒド−3−ホスフェートデヒドロゲナーゼ(G3PDH)を、別個の反応において、プライマー:5’−CCATGGAGAAGGCTGGGG−3’、及び5’−CAAAGTTGTCATGGATGACC−3’を使用して27サイクル増幅させた。産物は、1.5%のアガロースゲルで電気泳動し、ナイロンメンブレンに転移させ、放射性標識したTfR2及びG3PDHプローブとハイブリダイズしてオートラジオグラフィーにかけた。
【0040】
形質移入及び免疫ブロッティング:CHO−TRVb細胞は、5%のウシ胎児血清を添加したF12栄養混合物(Gibco−BRL)で維持した。アミノ末端FLAGタグ付TfR2−αcDNAを、pcDNA3(Invitrogen, Carlsbad, CA)へサブクローニングした。このプラスミド(100μg)をCHO−TRVb細胞内へ、リポフェクチン(Gibco-BRL)を使用して形質移入した。一過性の発現の場合には、細胞は形質移入後48時間後に回収した。安定に発現するクローンについても、G418(200μg/ml)の選択及び標準的な制限希釈法で単離した。蛋白質発現は、抗−FLAG(M5)抗体(Eastman Kodak, New Haven, CT)を使用して免疫ブロッティングで確認した。免疫ブロッティングの分析は、既に報告されているようにして行った(19)。
【0041】
細胞表面へのTfの結合についてのフローサイトメトリー分析
約3×10⁵の細胞を、5μg/mlのビオチン化ヒトホロTf(Sigma)添加済500μlのMEMα培地(GIBCO)(非標識の、ヒトホロ−Tf(Sigma)若しくはヒトLf(Calbiochem, San Diego, CA)の存在下又は非存在下)で、氷上で30分間インキュベーションした。0.1%ウシ血清アルブミン添加のPBSで2回洗浄した後、細胞をストレプトアビジン−PE(DAKO)とともにインキュベーションした。細胞を再び2回洗浄し、フローサイトメトリーで分析した。
【0042】
Tf仲介性の鉄取り込みの分析
0.25Mトリス−HCl、10μM NaHCO3、pH8.0の0.5ml中の1mgのヒトアポ−Tf(Sigma)を、0.5mlの100mMのニトロトリ酢酸二ナトリウム(0.4mCiの55FeCl3(NEM,Boston, MA )含有)と混合した。この混合物を室温で1時間インキュベーションし、放射性標識したTfをPD−10カラム(Pharmacia)でろ過して分離した。27,000cpm/mgの比活性が得られた。細胞を、MEMα培地中の55Fe−Tfと、200倍過剰の非標識ホロ−Tfの存在下又は非存在下で、37°C、5%CO2でインキュベーションした。PBSで洗浄した後、細胞を0.1NのNaOHで溶解し、放射能を液体シンチレーションカウンターで計測した。
【0043】
(結果)
TfR2遺伝子の、分子クローニング、染色体マッピング、及びゲノム構造
17個の5’−RACEクローン、及び10個の3’−RACEクローンを、7F−1cDNAライブラリーより単離した。これらのヌクレオチド配列の集合により、約2.9kbのcDNA配列(α型;GenBankアクセス番号AF067864 )が示された。5’及び3’の遺伝子特異的プライマーを使用して、推定の完全長コード配列を包含するcDNAクローンを、TF−1cDNAライブラリーからのPCRにより作製した。これにより、予想されるcDNA配列が、実際に発現しているmRNAに属していることが判明した。HL60のcDNAライブラリーを使用してTfR2をクローニングすると、5’−RACE産物は、TF−1ライブラリーに由来するものよりも短く、5’末端の配列は、異なっていた(β型)。TF−1ライブラリーに由来する全ての5’−RACE産物は、α型に属し、HL60に由来する5’−RACE産物はβ型に属していた。
【0044】
図1は、TfR2遺伝子を示す。図1によれば、約16kbpのゲノム断片が、ヒトのゲノムライブラリーよりクローニングされ(ゲノムクローン1)、制限酵素認識部位がマッピングされる。ゲノムクローン1の3.85kbpの断片(影付きのバーで示されるもの)を、pBluescriptII(+)プラスミド内にサブクローニングし、配列決定した。この図に示されるエクソン−イントロンの境界は、GenBank(アクセス番号 AP053356)に寄託されているデータに基づいているが、本出願人らのデータに基づく改変を一部含んでいる。α転写産物には、18のエクソン(線上の黒四角)が含まれている。β転写産物は、エクソン1−3を欠失していて、エクソン4の5’末端に142塩基が付加されている(線上の中空の丸)。下側の二つの四角は、α型及びβ型の転写産物の構造である。IC、TM、ECは、細胞内、経膜、及び細胞外のドメインをコードする配列をそれぞれ意味する。本発明で使用しているプローブの位置は、四角の下に示してある。
【0045】
放射性ハイブリッドパネル分析によれば、TfR2はD7S651マーカーとWI−5853マーカーとの間の、染色体7q22にマッピングされる。16kbのゲノムDNAクローンの制限酵素マッピング及び部分配列決定、並びに寄託されているが未発表のゲノム配列(20)とに比較により、α型は、18のエクソン(図1)からなることが判明した。しかしながら、そのエクソン−イントロン境界と、本出願人らのものとの間にはいくらかの違いが認められた。本出願人らの、TfR2−α転写産物のDNA配列を、その予想されているmRNA配列(20)と比較すると、エクソン8(TfR2-α転写産物のヌクレオチド1053−1133;GenBankアクセス番号AF067894)において81ヌクレオチドが付加されていて、エクソン18(ヌクレオチド2163と2164との間)において18ヌクレオチドを欠失している。これにより、本出願人らの予想したTfR2−α蛋白質に対しては27のアミノ酸が付加され、6のアミノ酸が欠失した。更に、本出願人らのmRNA配列は、3’非翻訳領域(UTR)(ヌクレオチド2580乃至2877)を含んでいた。
【0046】
β型は、オルタナティブなスプライシング又はプロモータの使用による産物であるが、これにはエクソン1、2、及び3が欠失していて、その最初のエクソン(α型のエクソン4)には、5’末端に142ヌクレオチドの塩基が付加されている(図1及び2)。図2は、エクソン3−5のDNA配列を示している。囲った配列は、β転写産物のみに見られた。実線の矢印及び破線の矢印は、それぞれα型及びβ型の転写産物をRT−PCRで合成するのに使用したプライマーを意味する。β転写産物の推定の翻訳開始コドンは、太字のATGで示してある。-3及び+4位のグアニンは、コザックの開始コドン配列と首尾一貫するが、これには下線を引いた。
【0047】
TfR2蛋白質及びmRNAの一次構造
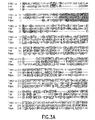
TfR2-αについて予想されるアミノ酸配列を図3に示してある。図3は、TfR2−αの推定のアミノ酸配列を、ヒトのTfR蛋白質及びPSMA蛋白質と整列して示している。同一の残基は囲ってある。推定の経膜部分に位置する疎水性のアミノ酸ストレッチには、影をつけてある。TfRの内部移行モチーフ及び対応する同等のTfR2-αのモチーフは、二重線を引いてある。TfR2-βの予想される第一メチオニンを太字で示してある。
【0048】
一対のアルギニンの後に続く、81位から104位までの疎水性のストレッチは、推定の経膜ドメインを表す。これは、アミノ末端に近い部位に位置しているが、TfR及びPSMAの経膜ドメイン(図3−4において、影のついた部分)と同様である(10、21)。TfR及びPSMAとの類推により、TfR2−αはおそらくII型の膜蛋白質である。従って、TfR2−αの残基1乃至80は、細胞質ドメインであり、残基105乃至801は、細胞外ドメインであるかもしれない。細胞外ドメインにおいては、TfR-αと、TfR又はPSMAとの間のアミノ酸配列相同性は、非常に高かった。TfR−2αの細胞外ドメインは、TfRのものとは45%の同一性があり、66%の相同性があった。PSMAとは、同一性は27%であり、相同性は60%であった。TfRの89位と98位にあるシステイン残基は、ジスルフィド結合を形成してホモ二量体化する。TfR2-αの108位と111位にあるシステイン残基は、類似の領域内に位置し、同様の機能を発揮するかもしれない。更に、TfR2-αにはYQRVモチーフ(アミノ酸23−26)が細胞質ドメインの真ん中に含まれるが、これはTfRのYTRFモチーフ(図3−4、二重の下線)と同様に、内部移行シグナルとして機能するかもしれない(22−24)。
【0049】
β転写産物には、エクソンの1乃至3が欠失しているが、これらには経膜及び細胞質ドメインの全部、並びに細胞外ドメインであって108位及び111位の二つのシステイン残基を含むものがコードされている。エクソン4の添加の142ヌクレオチドの5’配列には、開始コドンが含まれていない。翻訳はおそらくはヌクレオチド542のATGから開始されるであろうが、これはα転写産物ORFとフレームがあっている。推定の開始メチオニンは図2に、エクソン4は図3−4にそれぞれ太字のATGとMとで示してある。このATGには-3位及び+4位のGが含まれているが、これは翻訳に理想的な部位であることを意味している(25)。従って、β転写産物についての推定の蛋白質産物には、経膜ドメインとシグナルペプチドの両方が欠失していて、機能するかどうか不明である細胞内蛋白質となるおそれがある。
TfR−2蛋白質の一次構造は、TfRのものに極めて類似しているが、TfR2のmRNAの3’UTRは、TfR転写産物のものよりも短かった。また、典型的な鉄応答性配列(IRE)は、TfR2転写産物のいずれのUTRにも存在しなかった(26)。
【0050】
TfR2のmRNA発現の特徴付け
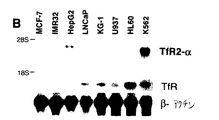
図5及び図6は、ヒトの組織のポリA+RNAのノーザンブロットの結果を示す。ハイブリダイゼーションは、32Pで標識したTfRプローブと行った。図5は、ヒトmRNAの多組織ブロットがTfR2プローブとハイブリダイズされたことを示している(図1のプローブ番号1)。メンブレンを同じボトル内で同時にハイブリダイズし、12時間露出下後にオートラジオグラフィーを現像した。図6においては、細胞株由来の全RNAの30μgをそれぞれのレーンにロードし、TfR2プローブ(プローブ番号2)及びTfRプローブとハイブリダイズした。32Pで標識されたβ-アクチンプローブを全てのブロットにおいて対照として使用した。分子量マーカー又はリボソームRNAの位置は、左側に示した。
【0051】
ヒトの組織からのポリA+RNAのノーザンブロット分析により、TfR2についての2.9kbのmRNAが、肝臓において主として発現していて、胃においてはより少ない程度で発現していることが示された(図5)。これは、TF−1細胞から単離されたTfR2−αの長さに対応する。更に、4kb(胃)と、1.7kb(肝臓、肺、小腸、胃、精巣、及び胎盤)の弱いバンドが観察された。これらのバンドは、TfR2mRNAのオルタナティブな別の形態の存在を反映しているのかもしれない。種々の細胞株の全RNAのノーザンブロット分析により、K562(赤白血病)、及びHepG2(肝芽腫)においてTfR2−αが高発現していることが判明した(図6)。TfR2-αの発現レベルは、TfRのものとは必ずしも相関関係にはなかった(図6)。TfR2-β(2.5kb)に対応する転写産物はノーザンブロット分析では一切観察されなかった。
【0052】
α及びβの転写産物の発現を比較するため、それぞれの形態に特異的なプライマーを使用して、RT−PCRを実施した。図7及び図8は、RT−PCR分析の代表的な結果を示す。RT−PCRは、G3PDH(27サイクル)、及びTfR2(35サイクル)のα及びβ転写産物に特異的なプライマーで行った。産物を1.5%のアガロースゲル電気泳動にかけて、ナイロンメンブレンに転移させ、放射性標識したプローブでハイブリダイズして、オートラジオグラフィーにかけた。図7は、ヒトの組織のcDNAのパネルを示すものである(MNC;ヒト末梢血単球)。図8は、種々のヒトの細胞株に由来するcDNAを示す。それぞれの試料について少なくとも2回実験を行ったが、図はこれらのうちの代表的な結果を示す。ML−1、Kasumi−3、HL60、及びMDA-MB-231のcDNAは陰性であったが、他の実験においてはα型の発現がかすかなレベルで示された。
【0053】
図7及び図8は、ヒトの組織cDNAのパネルを鋳型として使用して、α型の発現が肝臓、脾臓、筋肉、前立腺及び末梢血単球に限られていることを示している(図7)。一方、β型の発現は、調べたヒトの全ての組織において起こった。種々の組織に由来するヒトの癌細胞株を用いて、二つの転写産物の発現を調べた。この細胞株の多くは両方の転写産物を発現したが、次の3つは例外であった:SK−Hep1(肝細胞癌)は、α及びβの双方の転写産物を欠失していた;HepG−2(肝芽腫)及びML−1(骨髄芽球種)はβ転写産物を欠失していた(図8)。SK−Hep1のサザンブロット分析では、TfR2遺伝子の欠失や再配列のいずれも検出されなかった(データは示さず)。
【0054】
TfR2−αで形質転換された細胞へのTfの結合
TfR2−αの機能を分析するため、TfRの機能が欠失しているCHO−TRVb細胞を、FLAGのタグ付TfR2−αで安定に形質転換した。図9−11は、TfR2−α蛋白質の発現及び機能分析を示す。図9においては、細胞表面へのTf結合は、ネオマイシン耐性の対照CHO−TRVb細胞(左側のパネル)、FLAGのタグ付TfR2−αで安定に形質転換された細胞(中央)、及びTfRが安定に形質転換されたTRVb−1細胞(右側)で調べた。細胞は5μg/mlのビオチン化ヒトホロ−Tf添加のMEMα培地中で30分間、氷上でインキュベーションした。PBSでの洗浄後、細胞をストレプトアビジン−PEでインキュベーションし、フローサイトメトリーで分析した。実線は競合が無い場合のヒストグラムを示す。競合実験は、10倍(----)、又は100倍(−-−-−)過剰の非標識Tf(上側のパネル)又はLf(下側のパネル)の存在下で行った。図10においては、Tf仲介性の55Fe取り込みを、ネオマイシン耐性対照細胞CHO−TRVb(Neo細胞)、ヒトTfR安定形質転換細胞(TfR細胞)、及びFLAGタグ付TfR2−α安定形質転換細胞(TfR2細胞)で行った。中黒の記号(−C)は、非標識のTfを200倍過剰で行ったコールドの競合実験である。4つ一組(競合なし)又は3つ一組(コールドな競合)の何れかの実験の、平均±S.D.を示してある。図11においては、pcDNA3で一過性の形質転換を行った細胞由来の細胞溶解物(レーン1)、及びFLAGタグ付TfR2形質転換細胞(レーン2、及び3)を、4−15%のリニアー勾配SDS−PAGEゲルで電気泳動にかけた。レーン3の試料については、2−メルカプトエタノールを試料緩衝液から省いた。PVDFメンブレンへ転移した後、FLAG−融合蛋白質を免疫ブロッティングで検出した。分子量マーカーの位置は左側に示してある。
【0055】
図9−11においては、ビオチン化したTf及びフローサイトメトリーを使用して、細胞表面のTf結合を調べた。ネオマイシン耐性の対照細胞は、細胞表面のTf結合に関してほとんど陰性であった(図9、左)。TRVb−1はヒトのTfRで安定に形質転換された細胞であるが、これはTfの細胞表面結合に関して陽性であり、この結合は、非標識のTfにより競合されるが、Lfは競合しなかった(図9、中央)。TfR2−αを安定に発現しているCHO−TRVb細胞に関しては、細胞表面のTf結合の平均値は、対照細胞のものよりも明らかに高った(図9、右、実線)。競合実験においては、非標識のTfの10倍過剰量により、ビオチン化Tfの結合が阻害されたが、Lfは100倍過剰であっても結合を阻害しなかった(図9、右、点線)。TfR2−α細胞へのTfの結合もまた、CHO−TRVb細胞を使用して一過性発現系で調べたが、細胞表面へのTf結合のレベルは、一貫して以下の通りであった:TfR細胞>TfR2−α細胞>pcDNA3細胞(データは示さず)。
【0056】
TfR2−αで形質転換した細胞の、Tf仲介性55Feの取り込み
ヒトのTfR及びTfR2−αで安定に形質転換されたCHO−TRVb細胞を、55Fe-Tfとインキュベーションし、55Feの取り込みを測定した。ネオマイシン耐性のCHO−TRVb細胞を対照として使用した。TfR2−α細胞による、Tf仲介性の55Feの取り込みは、TfR細胞と匹敵した;これらの両方の細胞は、対照細胞よりも明らかに高かった(図10)。非標識Tfの200倍過剰量による競合はほぼ完全に、5hのインキュベーション後におけるこれら3つの細胞株による55Feの取り込みを阻害した(図10)。機能性のTfRが存在しないのにもかかわらず、Tf仲介性の55Feのわずかな取り込みが、対照のTRVb細胞において観察されたが、これはChanら(27)で以前報告されている通りである。
【0057】
ほ乳類細胞で発現した、FLAGタグ付TfR2−α蛋白質の二量体化
空のベクターであるpcDNA3、又はFLAGタグ付TfR2−αプラスミドで一過性の形質転換した細胞由来の細胞溶解物について、抗−FLAG抗体を使用した免疫ブロッティングにより調べた(図11)。還元条件下では、FLAG−タグ付きTfR2−αで形質転換した細胞の溶解物においては、〜105kDaの二つの近接移動バンドが観察された(レーン2)。2−メルカプトエタノールを試料ローディング緩衝液から省くと、〜105kDaの二重線が減少したが、〜215kDaの蛋白質が出現した(レーン3)。〜260kDa及び〜125kDaのかすかなバンドも、非還元条件下で観察された(レーン3、矢印)。
【0058】
考察
mRNAより推定したTfR2−α蛋白質の一次構造は、TfRのものと同一であった(結果の欄を参照)。更に、TfR2−αで形質転換した細胞は、Tf結合及びTf仲介性の鉄の取り込みの両方を増大することを示した(図9及び図10)。しかしながら、TfR2及びTfRの発現を制御する機構は異なっているかもしれない。TfR蛋白質のレベルは、転写後にその3’−UTR中のIREにより制御されているが、これに対して鉄制御蛋白質I(IRP−1)及びIRP−2が結合する。十分な鉄が欠乏している細胞内ではIRPは、TfRのmRNAの鉄応答性配列に結合し、その転写産物を安定化する。過剰の細胞内鉄が存在する場合、IRPは放出されてTfRmRNAの分解が生じる。急速に増殖している細胞においては、原癌遺伝子であるc−MYCがH−フェリチンを抑制して、IRP−2を上流制御し、IRP−2の上流制御によりTfR蛋白質発現が増大することがある(28)。TfR2のmRNAの3’、5’−UTRのいずれも、検出可能なIRE様構造を有しないが、これは別の機構によりTfR2発現が制御されることを示唆している。
【0059】
種々の組織由来の、健常なヒトのポリA+RNAを使用したノーザンブロットにより、TfR2−αを主に発現している細胞のタイプは肝臓のみであることが示された(図5)。また、TfR2−αは、ヘモグロビン合成が可能な、K562赤白血病細胞株内で高発現していた(図6)。この結果は、赤血球造血細胞もまた、高レベルのTfR2−αを発現していることを示唆している。赤血球細胞の主要な産物は、鉄を豊富に含んだヘモグロブリンであり、TfR2−αが鉄の輸送に関与するならば、これはこれらの細胞で強く発現するであろう。赤血球細胞においてはCotnerらは、TfRに対する一組のモノクローナル抗体を使用して、TfRのオルタナティブな型が存在することを予測した(29)。彼らの発見は、TfR2−αに帰属することができる。
【0060】
ほ乳類細胞内で発現したFLAGタグ付のTfR2−αのサイズは、還元剤の存在下では〜105kDaであり、還元剤の非存在下では〜215kDaであるが(図11)、これはジスルフィド結合によりTfR2−αの二量体化を意味している。FLAGタグ付のTfR2−αのモノマーは〜105kDaであるが、これはアミノ酸配列から計算される分子量(〜90kDa)よりも大きい。このことは、グリコシル化等の蛋白質の翻訳後の修飾を反映しているのかもしれない。実際に、N−グリコシル化部位が、TfR2−α蛋白質において4つ推定されている(アミノ酸240−243、339−342、540−543、及び754−757)。従って、図11に見られる〜105kDaの二重のバンドは、グリコシル化の異なる段階のものによるものかもしれない。更に、それぞれ〜215kDa及び〜105kDaのクリアーなバンドの上にある、〜260kDa及び〜125kDaのかすかなバンドは、非還元条件下において観察された(図11、レーン3、矢印)。これらのかすかなバンドは、ジスルフィド結合による、TfR2−αと小型蛋白質(〜20kDa)(これはリガンドであるかもしれないし、又はそうではないかもしれない)との相互作用を反映しているものかもしれない。
【0061】
TfR2の機能を調べるため、Tf及びTfファミリーの他のメンバーを、TfR2のリガンド候補として考慮した。Tfファミリーの6つのメンバー、Tf、Lf、メラノトランスフェリン(30)、オボトランスフェリン、サキシフィリン(saxiphilin)(31)、及び炭酸脱水酵素のブタの阻害剤(32)がこれまでにクローニングされている。最後の2つは、鉄結合性を有さず、最後の3つはヒトにおいては同定されていない。メラノトランスフェリンは、TfR2のリガンドではないようであるが、それはメラノーマ細胞の膜結合蛋白質であるからである。Tf及びlfのみが、候補として残る。FLAGのタグ付TfR2−αで形質転換したCHO−TRVb細胞は、対照細胞と比較して高レベルの、細胞表面へのTf結合を示した(図9)。このことは、FLAGのタグ付のTfR2−αが、細胞表面に露出し、Tfにより結合されていることを意味している。この結合は、非標識のTfで効果的に競合されるが、Lfでは競合されない(図9)。このことは、TfはLfよりもTfR2−αにより特異的に結合することを意味する。更に、TfR2−αで形質転換した細胞によるTf仲介性の鉄の取り込みは、対照細胞よりも明らかに高かった(図10)。
【0062】
しかしながら、もしTfR2−αに対する唯一のリガンドがTfであり、TfR2−αの主な機能が細胞の鉄の取り込みであるならば、なぜ細胞はTfに対する二つの受容体を有するのであろうか?TfR2−αはただ単に、異なる親和性を有する別のトランスフェリン受容体であるかもしれない。おそらくは、Tf/TfR2−α複合体の細胞表面上での行く末は、Tf/TfR複合体のものとは異なっているかもしれない。TfR2−αの推定の内部移行モチーフは、TfRのものとは同一ではなく、内部移行におけるマイナーな差異でさえもが、エンドソームの到達地を変える可能性がある(24)。更に、TfR2−αが、Tf以外の別の特異的リガンドを有する可能性が残る。遺伝的ヘモクロマトーシスの患者の多くにおいて変異しているHFE(8、9)、及び小腸の鉄トランスポーターであるNramp2(33、34)の発見により、鉄の代謝の分野は最近になってかなりの進歩をしている。HFEは通常はTfRと細胞膜上において複合体を形成するが、これに対してTfR2−αは結合するのであろうか?もしそうならば、TfR2−αはHFEをキレートして細胞の鉄の取り込みに影響を与えるかもしれない。TfR2−αはTfRとヘテロ二量体を形成するのであろうか?これもまた、細胞の鉄の取り込みに影響を与えるかもしれない。TfR2の正確な役割が分かれば、細胞の鉄の取り込みの機構と制御を明確にするための重要なステップが供給されるであろう。
【0063】
我々は、TfR2遺伝子の二つの異なる型、αとβをクローニングした。二つの異なる転写産物は、TfR様ファミリーの他のメンバーであるPSMA遺伝子からも発現される。PSMAの短い型は、TfR2のβ型と同様に、経膜ドメインをコードする5’末端を欠失している(35)。PSMAのmRNAについての長い型及び短い型の発現が、ほぼ100倍の差異の比率で、前立腺癌の進行中に起こることが報告されている(36)。非常に感受性のあるRT−PCR法を使用して、TfR2遺伝子(α型及びβ型)の発現を区別することができた。正常な組織のなかでは、α型(長いほう)の発現は、肝臓、脾臓、肺、筋肉、前立腺の細胞、及び末梢血単球で検出された(図7)。β型はより後半に分布していた。興味深いことに、肝臓由来の二つの細胞株(SK−Hep1及びHepG2)は、β型の発現を欠いていたが、一方、他の組織由来の多くの細胞株においては正常な肝臓の細胞と同様にして、この短い型を発現していた(図7及び図8)。
【0064】
TfR2は、染色体の7q22へマッピングされた。この染色体領域のヘテロ接合性の欠失又は喪失が、脊髄形成異常症、急性骨髄性白血病や、卵巣癌及び膵臓癌を含む複数の悪性疾患において報告されている(37−41)。TfR2の変異がこれらの癌において起こるかもしれないと考えられる。
【0065】
【参考文献】
【図面の簡単な説明】
【図1】 この図は、トランスフェリン受容体2(TfR2)遺伝子の遺伝子地図である。
【図2】 この図は、TfR2遺伝子のエクソン3−5のDNA配列を示す。四角でかこった配列は、β転写産物においてのみ見られる。
【図3】 この図は図4とともに、TfR2−αの推定のアミノ酸配列を、ヒトのTfR及びPSMA蛋白質のものと整列させて示すものである。
【図4】 この図は図3とともに、TfR2−αの推定のアミノ酸配列を、ヒトのTfR及びPSMA蛋白質のものと整列させて示すものである。
【図5】 この図は、ヒトのmRNAの多組織ブロットでのノーザンブロット分析の結果(A)を示すものである。
【図6】 この図は、全RNAの細胞株ブロットでのノーザンブロット分析の結果(B)を示すものである。
【図7】 この図は図8とともに、TfR2のα及びβ転写産物に対するプライマーで行ったRT−PCR(35サイクル)、及びG3PDHのα及びβ転写産物に対するプライマーで行ったRT−PCR(27サイクル)の代表的な結果を示すものである。
【図8】 この図は図7とともに、TfR2のα及びβ転写産物に対するプライマーで行ったRT−PCR(35サイクル)、及びG3PDHのα及びβ転写産物に対するプライマーで行ったRT−PCR(27サイクル)の代表的な結果を示すものである。
【図9】 この図は図10、11とともに、TfR2−α蛋白質の発現及び機能的分析を示すものである。
【図10】 この図は図9、11とともに、TfR2−α蛋白質の発現及び機能的分析を示すものである。
【図11】 この図は図9、10とともに、TfR2−α蛋白質の発現及び機能的分析を示すものである。
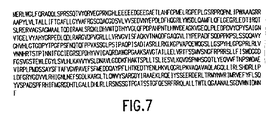
【図12】 この図は、配列番号:1のTfR2蛋白質のアミノ酸配列を示す。
【図13】 この図は、配列番号:2のTfR2−α遺伝子のDNA配列を示す。
【図14】 この図は、配列番号:3のTfR2−βのDNA配列を示す。
【配列表】
Claims (16)
- (a)配列番号:1のアミノ酸配列;
(b)配列番号:2の核酸配列によりコードされるアミノ酸配列;および
(c)配列番号:3の核酸配列によりコードされるアミノ酸配列
からなる群から選択される配列を有するポリペプチドをコードする核酸を含む単離された核酸分子であって、
トランスフェリンレセプターを欠失する細胞を当該核酸分子で形質転換し、当該細胞を栄養培地中の5μg/mlのトランスフェリンと氷上で30分間インキュベーションすると、前記ポリペプチドとトランスフェリンとの間に結合を生じる核酸分子。 - 請求項1記載の単離された核酸分子に相補的な核酸分子と厳密条件下でハイブリダイズし、かつTfR2活性を有するポリペプチドをコードする、単離された核酸分子。
- 請求項1または2に記載の単離された核酸分子を具備する組換え発現ベクター。
- 原核細胞または真核細胞である、請求項3記載のベクターを含む宿主細胞。
- 機能的TfR2蛋白質を発現する、請求項4記載の宿主細胞。
- 請求項1または2に記載の単離された核酸分子に相補的である単離されたmRNA。
- RNA転写のプロモーターに作動的に連結された、請求項1または2に記載の単離された核酸分子を具備するオリゴヌクレオチド組成物。
- (a)配列番号:1のアミノ酸配列;
(b)配列番号:2の核酸配列によりコードされるアミノ酸配列;および
(c)配列番号:3の核酸配列によりコードされるアミノ酸配列
からなる群から選択される配列を有する単離されたTfR2ポリペプチド。 - 請求項2記載の単離された核酸分子のいずれか一つにコードされる単離されたTfR2ポリペプチド。
- TfRポリペプチドのアミノ酸配列と比較して異なるいずれかの配列部位において、配列番号:1記載のアミノ酸配列により表されるTfR2ポリペプチドに特異的に結合する抗体。
- モノクローナル抗体である、請求項10記載の抗体。
- ポリクローナル抗体である、請求項10記載の抗体。
- TfR2蛋白質の機能を阻害するため、またはTfR2蛋白質と他の蛋白質若しくはリガンドとの相互作用を阻害するために十分な量の、請求項10記載の抗体を具備する組成物。
- (a)請求項10に記載の抗体を準備する工程、
(b)細胞のTfR2蛋白質に抗体が結合することを許容する条件下で、細胞を抗体に接触させる工程、
(c)前記の細胞に結合した抗体を検出する工程、
を具備する、細胞表面上のTfR2蛋白質の存在を検出する方法。 - 前記の抗体が、検出可能なマーカーで標識されている、請求項14記載の方法。
- 前記の検出可能なマーカーが、放射性ヌクレオチド、酵素、蛍光素、発色団、及び化学発光標識からなる群より選択される、請求項15記載の方法。
Applications Claiming Priority (5)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US10750298P | 1998-11-06 | 1998-11-06 | |
| US60/107,502 | 1998-11-06 | ||
| US09/358,755 US6891028B1 (en) | 1998-11-06 | 1999-07-22 | Nucleic acids encoding transferrin receptor-like proteins |
| US09/358,755 | 1999-07-22 | ||
| PCT/US1999/026205 WO2000027874A2 (en) | 1998-11-06 | 1999-11-04 | Nucleic acids encoding transferrin receptor-like proteins and products related thereto |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| JP2002530056A JP2002530056A (ja) | 2002-09-17 |
| JP3920573B2 true JP3920573B2 (ja) | 2007-05-30 |
Family
ID=26804853
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2000581051A Expired - Fee Related JP3920573B2 (ja) | 1998-11-06 | 1999-11-04 | トランスフェリン受容体様蛋白質をコードする核酸、及びその関連産物 |
Country Status (5)
| Country | Link |
|---|---|
| US (3) | US6891028B1 (ja) |
| EP (1) | EP1044218A1 (ja) |
| JP (1) | JP3920573B2 (ja) |
| AU (1) | AU1469600A (ja) |
| WO (1) | WO2000027874A2 (ja) |
Families Citing this family (5)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| AT411999B (de) * | 2001-08-17 | 2004-08-26 | Viennalab Labordiagnostika Gmb | Verfahren zur genetischen diagnose von hämochromatose sowie sonden zur genetischen diagnose von hämochromatose |
| CN103443125B (zh) | 2010-11-30 | 2019-05-03 | 霍夫曼-拉罗奇有限公司 | 低亲和力血脑屏障受体抗体及其用途 |
| ES3063092T3 (en) * | 2017-06-14 | 2026-04-15 | Kymab Ltd | Use of the extracellular domain of the transferrin receptor 2 for diagnosis and treatment of primary and secondary sclerosing diseases |
| US10349638B2 (en) | 2017-07-14 | 2019-07-16 | Tai-Jay Chang | Human ARCAP transgenic mouse |
| US12011489B2 (en) * | 2022-03-30 | 2024-06-18 | Christopher Key | Compositions and methods for treating inflammatory disease |
-
1999
- 1999-07-22 US US09/358,755 patent/US6891028B1/en not_active Expired - Lifetime
- 1999-11-04 JP JP2000581051A patent/JP3920573B2/ja not_active Expired - Fee Related
- 1999-11-04 AU AU14696/00A patent/AU1469600A/en not_active Abandoned
- 1999-11-04 EP EP99971816A patent/EP1044218A1/en not_active Withdrawn
- 1999-11-04 WO PCT/US1999/026205 patent/WO2000027874A2/en not_active Ceased
-
2004
- 2004-12-07 US US11/005,957 patent/US7083934B2/en not_active Expired - Fee Related
-
2006
- 2006-06-07 US US11/448,552 patent/US7211251B2/en not_active Expired - Fee Related
Also Published As
| Publication number | Publication date |
|---|---|
| US7083934B2 (en) | 2006-08-01 |
| US20050233385A1 (en) | 2005-10-20 |
| WO2000027874A3 (en) | 2000-08-03 |
| AU1469600A (en) | 2000-05-29 |
| EP1044218A1 (en) | 2000-10-18 |
| JP2002530056A (ja) | 2002-09-17 |
| US7211251B2 (en) | 2007-05-01 |
| US20060216758A1 (en) | 2006-09-28 |
| WO2000027874A2 (en) | 2000-05-18 |
| US6891028B1 (en) | 2005-05-10 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| KR20140114464A (ko) | 종양에서 특이적으로 발현되는 유전 산물 및 그의 용도 | |
| JP2004505617A (ja) | Trp8、Trp9およびTrp10、癌の新規マーカー | |
| NZ503404A (en) | The presence of unique DNA and RNA molecules in prostate tumour cells and their use in diagnostic detection methods | |
| JP3779989B2 (ja) | リンパ抗原cd30 | |
| US6617430B2 (en) | Ataxin-2 binding proteins | |
| US7083934B2 (en) | Method for detecting transferrin receptor-like proteins | |
| WO2000029571A1 (fr) | Gene codant une proteine transmembranaire | |
| JPWO2000029571A1 (ja) | 新規膜貫通蛋白質をコードする遺伝子 | |
| US5871916A (en) | ECDN protein and DNA encoding the same | |
| JP5709815B2 (ja) | 脳型有機アニオントランスポーターとその遺伝子 | |
| JPH0892289A (ja) | ヒトマッカード−ジョセフ病関連蛋白質、その蛋白質をコードするcDNAおよび遺伝子、そのDNAまたは遺伝子を含むベクター、その発現ベクターで形質転換された宿主細胞、マッカード−ジョセフ病の診断方法および治療剤 | |
| US20060194293A1 (en) | Rb1 gene induced protein (rb1cc1) and gene | |
| JPH10201491A (ja) | タンパク質ホスファターゼ1結合タンパク質r5 | |
| US7063959B1 (en) | Compositions of the SOC/CRAC calcium channel protein family | |
| JPH1142093A (ja) | シアロアドヘシンファミリーメンバー−3 | |
| WO2001018037A2 (en) | A p53-induced protein with a death domain that can promote apoptosis | |
| JP4223536B2 (ja) | 脳型有機アニオントランスポーターとその遺伝子 | |
| JP2001508642A (ja) | ビタミンd応答エレメント結合タンパク質 | |
| US20090018071A1 (en) | Epididymis-specific receptor protein | |
| JP2001508297A (ja) | ヒトエンドスルフィン遺伝子 | |
| US7928188B2 (en) | Antigen polypeptide for the diagnosis and/or treatment of ovarian cancer | |
| JP4301541B2 (ja) | Smg−1結合タンパク質及びその活性を制御する物質のスクリーニング方法 | |
| WO2001053490A1 (en) | Genes encoding abc1 paralogs and the polypeptides derived therefrom | |
| US20020081608A1 (en) | Tumor associated proteins | |
| JPH09238685A (ja) | 脳虚血関連遺伝子 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20040210 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20040309 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20040609 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20040616 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20040908 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20050524 |
|
| A601 | Written request for extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A601 Effective date: 20050824 |
|
| A602 | Written permission of extension of time |
Free format text: JAPANESE INTERMEDIATE CODE: A602 Effective date: 20050831 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20051124 |
|
| TRDD | Decision of grant or rejection written | ||
| A01 | Written decision to grant a patent or to grant a registration (utility model) |
Free format text: JAPANESE INTERMEDIATE CODE: A01 Effective date: 20070116 |
|
| A61 | First payment of annual fees (during grant procedure) |
Free format text: JAPANESE INTERMEDIATE CODE: A61 Effective date: 20070215 |
|
| R150 | Certificate of patent or registration of utility model |
Free format text: JAPANESE INTERMEDIATE CODE: R150 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20100223 Year of fee payment: 3 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20110223 Year of fee payment: 4 |
|
| FPAY | Renewal fee payment (event date is renewal date of database) |
Free format text: PAYMENT UNTIL: 20120223 Year of fee payment: 5 |
|
| LAPS | Cancellation because of no payment of annual fees |