KR20170096012A - 항-ox40 또는 항-gitr 항체와 리스테리아-기반 백신의 조합 - Google Patents
항-ox40 또는 항-gitr 항체와 리스테리아-기반 백신의 조합 Download PDFInfo
- Publication number
- KR20170096012A KR20170096012A KR1020177019838A KR20177019838A KR20170096012A KR 20170096012 A KR20170096012 A KR 20170096012A KR 1020177019838 A KR1020177019838 A KR 1020177019838A KR 20177019838 A KR20177019838 A KR 20177019838A KR 20170096012 A KR20170096012 A KR 20170096012A
- Authority
- KR
- South Korea
- Prior art keywords
- another embodiment
- protein
- fragment
- antigen
- gene
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Withdrawn
Links
Images















































Classifications
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/0005—Vertebrate antigens
- A61K39/0011—Cancer antigens
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/0005—Vertebrate antigens
- A61K39/0011—Cancer antigens
- A61K39/001102—Receptors, cell surface antigens or cell surface determinants
- A61K39/001103—Receptors for growth factors
- A61K39/001106—Her-2/neu/ErbB2, Her-3/ErbB3 or Her 4/ErbB4
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/0005—Vertebrate antigens
- A61K39/0011—Cancer antigens
- A61K39/001193—Prostate associated antigens e.g. Prostate stem cell antigen [PSCA]; Prostate carcinoma tumor antigen [PCTA]; PAP or PSGR
- A61K39/001194—Prostate specific antigen [PSA]
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/02—Bacterial antigens
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/39—Medicinal preparations containing antigens or antibodies characterised by the immunostimulating additives, e.g. chemical adjuvants
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K39/395—Antibodies; Immunoglobulins; Immune serum, e.g. antilymphocytic serum
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P13/00—Drugs for disorders of the urinary system
- A61P13/08—Drugs for disorders of the urinary system of the prostate
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P15/00—Drugs for genital or sexual disorders; Contraceptives
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P31/00—Antiinfectives, i.e. antibiotics, antiseptics, chemotherapeutics
- A61P31/12—Antivirals
- A61P31/20—Antivirals for DNA viruses
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P35/00—Antineoplastic agents
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P37/00—Drugs for immunological or allergic disorders
- A61P37/02—Immunomodulators
- A61P37/04—Immunostimulants
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P43/00—Drugs for specific purposes, not provided for in groups A61P1/00-A61P41/00
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/005—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from viruses
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/005—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from viruses
- C07K14/01—DNA viruses
- C07K14/025—Papovaviridae, e.g. papillomavirus, polyomavirus, SV40, BK virus, JC virus
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/195—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from bacteria
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/46—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans from vertebrates
- C07K14/47—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans from vertebrates from mammals
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/705—Receptors; Cell surface antigens; Cell surface determinants
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
- C07K16/18—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans
- C07K16/28—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans against receptors, cell surface antigens or cell surface determinants
- C07K16/2803—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans against receptors, cell surface antigens or cell surface determinants against the immunoglobulin superfamily
- C07K16/2818—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans against receptors, cell surface antigens or cell surface determinants against the immunoglobulin superfamily against CD28 or CD152
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/505—Medicinal preparations containing antigens or antibodies comprising antibodies
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/51—Medicinal preparations containing antigens or antibodies comprising whole cells, viruses or DNA/RNA
- A61K2039/52—Bacterial cells; Fungal cells; Protozoal cells
- A61K2039/522—Bacterial cells; Fungal cells; Protozoal cells avirulent or attenuated
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K39/00—Medicinal preparations containing antigens or antibodies
- A61K2039/57—Medicinal preparations containing antigens or antibodies characterised by the type of response, e.g. Th1, Th2
- A61K2039/572—Medicinal preparations containing antigens or antibodies characterised by the type of response, e.g. Th1, Th2 cytotoxic response
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K2319/00—Fusion polypeptide
- C07K2319/40—Fusion polypeptide containing a tag for immunodetection, or an epitope for immunisation
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K2319/00—Fusion polypeptide
- C07K2319/95—Fusion polypeptide containing a motif/fusion for degradation (ubiquitin fusions, PEST sequence)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2710/00—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA dsDNA viruses
- C12N2710/00011—Details
- C12N2710/20011—Papillomaviridae
- C12N2710/20034—Use of virus or viral component as vaccine, e.g. live-attenuated or inactivated virus, VLP, viral protein
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Medicinal Chemistry (AREA)
- General Health & Medical Sciences (AREA)
- Organic Chemistry (AREA)
- Immunology (AREA)
- Veterinary Medicine (AREA)
- Pharmacology & Pharmacy (AREA)
- Public Health (AREA)
- Animal Behavior & Ethology (AREA)
- Microbiology (AREA)
- Epidemiology (AREA)
- Mycology (AREA)
- Molecular Biology (AREA)
- Biochemistry (AREA)
- Genetics & Genomics (AREA)
- Biophysics (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- General Chemical & Material Sciences (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Oncology (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Virology (AREA)
- Gastroenterology & Hepatology (AREA)
- Engineering & Computer Science (AREA)
- Cell Biology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Developmental Biology & Embryology (AREA)
- Urology & Nephrology (AREA)
- Reproductive Health (AREA)
- Endocrinology (AREA)
- Communicable Diseases (AREA)
- Biotechnology (AREA)
- Toxicology (AREA)
- Zoology (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
- Medicines Containing Antibodies Or Antigens For Use As Internal Diagnostic Agents (AREA)
- Medicines Containing Material From Animals Or Micro-Organisms (AREA)
- Peptides Or Proteins (AREA)
Abstract
종양-관련 항원을 포함하는 이종 항원에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열의 융합 단백질을 포함하는 생 약독화 재조합 리스테리아 균주를 포함하는 조성물의 사용을 포함하는 조성물이 본원에 개시되는데, 여기에서 조성물은 항체 또는 이의 단편을 추가로 포함하거나 이와 공동-투여된다. 종양을 치료, 이에 대한 보호, 및/또는 이에 대한 면역 반응을 유도하는 데 사용하기 위해 항체 또는 이의 단편과 함께, 생 약독화 재조합 리스테리아 균주를 포함하는 이들 조성물의 사용을 포함하는 병용 요법이 또한 개시되는데, 특히 여기에서 치료, 이에 대한 보호, 및/또는 면역 반응의 유도는 대상에서 생존 백분율을 증가시킨다.
Description
종양-관련 항원을 포함하는 이종 항원에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열의 융합 단백질을 포함하는 생 약독화 재조합 리스테리아 균주를 포함하는 조성물의 사용을 포함하는 조성물이 본원에 개시되는데, 여기에서 조성물은 항체 또는 이의 단편을 추가로 포함하거나 이와 공동-투여된다. 종양을 치료, 이에 대한 보호, 및/또는 이에 대한 면역 반응을 유도하는 데 사용하기 위해 항체 또는 이의 단편과 함께, 생 약독화 재조합 리스테리아 균주를 포함하는 이들 조성물의 사용을 포함하는 병용 요법이 또한 개시되는데, 특히 여기에서 치료, 이에 대한 보호, 및/또는 면역 반응의 유도는 대상에서 생존 백분율을 증가시킨다.
리스테리아 모노사이토젠 ( Listeria monocytogenes )(Lm)은 리스테리아증(listeriolysis)을 야기하는 그람 양성 조건 세포내 병원체이다. 일단 숙주 세포에 침입하면, Lm은 기공-형성 단백질 리스테리올리신 O(LLO)의 생산을 통해 파고리소좀으로부터 탈출하여 혈관 세포막을 용해시켜, 세포질에 들어갈 수 있도록 할 수 있는데, 여기에서 그것은 복제되고 액틴-중합화 단백질(ActA)의 이동성을 기반으로 인접 세포들에 전파된다. 세포질 내에서, Lm-분비 단백질은 프로테아좀에 의해 분해되고 소포체에서 MHC 클래스 I 분자와 관련되는 펩티드로 가공된다. 이 독특한 특성은 종양-특이적 세포독성 T 림프구(CTL)를 활성화시키도록 종양 항원에 MHC 클래스 I 분자가 제공될 수 있다는 점에서 그것을 매우 매력적인 암 백신 벡터로 만든다.
또한, 일단 식균되면, Lm은 다음에 파고리소좀 구획에서 가공되고 Lm-특이적 CD4-T 세포 반응의 활성화를 위해 MHC 클래스 II에 펩티드가 제공될 수 있다. 대안적으로, Lm은 파고좀에서 탈출하고 시토졸로 들어갈 수 있어, 여기에서 핵 올리고머화 도메인-유사 수용체에 의한 펩티도글리칸의, 그리고 DNA 센서 AIM2에 의한 Lm DNA의 인식이 염증 캐스케이드를 활성화시킨다. 염증 반응 및 항원의 MHC I 및 MHC II 경로로의 효과적인 전달의 조합은 종양을 치료, 이에 대한 보호, 그리고 이에 대한 면역 반응을 유도하는 데 있어서 Lm을 강력한 백신 벡터로 만든다.
그러나, 종양 세포는 종종 면역억제성 미세환경을 유도하는데, 이는 골수-유래 억제 세포(MDSC) 및 조절 T 세포(Treg)와 같은 면역억제성 면역 세포 집단의 발생에 유리하다. 종양에 의한 면역조절의 복잡성을 이해하는 것은 면역요법의 개발을 위해 중요하다. 항-종양 면역 반응을 증진시키고 '면역 관문(immune checkpoint)'을 극복하기 위해 다양한 전략이 개발되고 있다. 또한, 병용 면역요법제의 투여는 더 효과적이고 지속적인 반응을 제공할 수 있다.
예를 들어, 종양-매개 면역 억제의 여러 기전 중 하나는 종양에 의한 T-세포 공동-억제 분자의 발현이다. 이들 분자는 리간드와의 결합 시 말초 및 종양 미세환경에서 주효 림프구를 억제할 수 있다.
현재, 종양 성장 및 암을 제거할 수 있는 종양 표적화 방법을 위한 효과적인 병용 요법을 제공할 필요성이 있다. 본 발명은 항체 또는 이의 단편의 첨가를 포함하는 다양한 요법과 리스테리아 기반 백신의 조합을 제공하는 것에 의해 이러한 요구를 다루고 있는데, 이는 기억 및 주효 T 세포의 증식을 증진 또는 용이하게 하고, T 세포 또는 항원 제시 세포에서 공동자극 수용체를 활성화시킬 수 있다. 공동자극은 리스테리아-기반 백신의 투여로부터 야기되는 항원 제시에 더하여, 특정 종양 또는 암에 대하여 효과적인 항-종양 면역 반응의 발생에 결정적일 수 있는 것으로 생각된다.
표적화된 면역조절 요법은, 예를 들어 4-1BB, OX40 및 GITR(글루코코르티코이드-유도 TNF 수용체-관련)을 포함하는 종양 괴사 인자 수용체 수퍼패밀리의 구성원을 표적으로 하는 효능제 항체를 사용하는 것에 의해, 일차적으로 공동자극 수용체의 활성화에 초점을 둔다. GITR의 조절은 항종양 및 백신 세팅 둘 다에서 가능성을 보여주었다. 효능제 항체에 대한 다른 표적은 T 세포 활성화를 위한 공동-자극 신호 분자이다. 공동자극 신호 분자의 표적화는 T 세포의 증진된 활성화 및 더 강력한 면역 반응의 용이성을 유도할 수 있다. 공동-자극은 또한 관문 억제로부터의 억제 영향을 방지하고 항원-특이적 T 세포 증식을 증가시키도록 도울 수 있다. 불행하게도, 이러한 효능제 항체의 사용은 독성 문제를 유도할 수 있다. 그러므로, 항-종양 면역요법의 개발에서는 고려되는 리스테리아 기반 면역요법제 조성물과 임의의 효능제 항체 조합의 안전하고 효과적인 용량을 설정하는 것이 필수적이다.
따라서, 임의의 면역요법 효능제 항체와의 조합 리스테리아 기반 면역요법제 조성물을 투여하기 위한 용량 및 계획을 최적화할 필요가 남아있다. 본 발명은 또한 종양 발생에 반응하여 효능제 항체와 리스테리아 기반 백신의 조합을 제공하는 것에 의해 이 요구를 다룬다.
암을 포함하는 특정 질환의 복잡성을 고려하면, 이를 치료하는 데 있어서 조합된 접근법의 필요성이 존재한다. 하기 상세한 설명에서 알 수 있는 바와 같이, 이들 병용 요법은 면역 요법의 전체적인 항-종양 효능을 개선할 수 있다.
일 양태에서, 본 개시는 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물과 관련되는데, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질 또는 PEST 아미노산 서열을 포함하고, 상기 조성물은 항체 또는 이의 단편을 추가로 포함한다. 다른 양태에서, 항체 또는 이의 단편은 효능제 항체 또는 이의 단편이다. 다른 양태에서, 항체 또는 이의 단편은 T-세포 수용체 공동-자극 분자, 공동-자극 분자에 결합하는 항원 제시 세포 수용체 또는 TNF 수용체 수퍼패밀리의 구성원을 포함하는 항원 또는 이의 일부에 결합한다.
다른 양태에서, 본 개시는 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물과 관련되는데, 상기 핵산 분자는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O 단백질, 절단된 ActA 단백질 또는 PEST 아미노산 서열을 포함하는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 상기 조성물은 항체 또는 이의 단편을 추가로 포함한다. 다른 양태에서, 항체 또는 이의 단편은 효능제 항체 또는 이의 단편이다. 다른 양태에서, 항체 또는 이의 단편은 T-세포 수용체 공동-자극 분자, 공동-자극 분자에 결합하는 항원 제시 세포 수용체 또는 TNF 수용체 수퍼패밀리의 구성원을 포함하는 항원 또는 이의 일부에 결합한다. 다른 관련된 양태에서, 리스테리아 균주에 포함되는 핵산 분자는 절단된 LLO 단백질을 암호화한다. 다른 관련된 양태에서, 리스테리아 균주에 포함되는 핵산 분자는 절단된 LLO 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화한다.
다른 관련된 양태에서, 본 발명은 대상에서 증진된 항-종양 T 세포 반응을 유발하는 방법과 관련되는데, 상기 방법은 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 상기 대상에 투여하는 단계를 포함하며, 상기 리스테리아 균주는 핵산 분자를 포함하고, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O 단백질, 절단된 ActA 단백질 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다.
다른 관련된 양태에서, 본 개시는 핵산 분자를 포함하는 재조합 리스테리아 균주의 사용을 포함하는, 대상에서 증진된 항-종양 T 세포 반응을 유발하는 방법과 관련되는데, 상기 핵산 분자는 절단된 LLO 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다.
다른 관련된 양태에서, 본 개시는 대상에서 항원-특이적 T 세포를 증가시키는 방법과 관련되는데, 상기 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 상기 대상에 투여하는 단계를 포함하며, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O 단백질, 절단된 ActA 단백질 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다.
다른 관련된 양태에서, 본 개시는 핵산 분자를 포함하는 재조합 리스테리아 균주의 사용을 포함하는, 대상에서 T 세포 반응을 증가시키는 방법과 관련되는데, 상기 핵산 분자는 절단된 LLO 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다.
다른 관련된 양태에서, 본 개시는 대상에서 종양 또는 암을 치료하는 방법과 관련되는데, 상기 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 상기 대상에 투여하는 단계를 포함하며, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O 단백질, 절단된 ActA 단백질 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다.
다른 관련된 양태에서, 대상에서 종양 또는 암을 치료하기 위한 본 발명의 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주의 사용을 포함하는데, 상기 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다.
다른 관련된 양태에서, 본 발명은 대상에서 생존을 증가시키는 방법과 관련되는데, 상기 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 상기 대상에 투여하는 단계를 포함하며, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O 단백질, 절단된 ActA 단백질 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다. 다른 관련된 양태에서, 대상에서 생존을 증가시키기 위한 본 발명의 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주의 사용을 포함하는데, 상기 핵산 분자는 절단된 LLO 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 이 방법은 항-TNF 수용체 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다.
본 발명의 다른 특징 및 장점은 다음과 같은 상세한 설명 실시예 및 도면으로부터 명백해질 것이다. 그러나, 본 발명의 사상 및 범위 내에서의 다양한 변경 및 수정은 본 상세한 설명으로부터 당업자에게 명백해질 것이므로, 상세한 설명 및 구체적인 실시예는 본 발명의 바람직한 구현예를 나타내면서 단지 예시적으로만 주어지는 것으로 이해해야 한다.
본 발명으로 간주되는 주제는 본 명세서의 결론 부분에서 특히 지적되고 명확하게 청구된다. 그러나, 본 발명은 그 목적, 특징 및 장점과 함께, 구성 및 작동 방법 둘 다 첨부된 도면과 함께 읽을 때 다음과 같은 상세한 설명을 참조하여 가장 잘 이해될 수 있다:
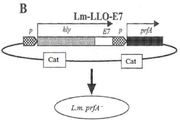
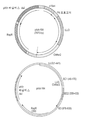
도 1a 및 1b. Lm-E7 및 Lm-LLO-E7(ADXS11-001)는 E7을 발현 및 분비하도록 상이한 발현 시스템을 사용한다. Lm-E7은 L. 모노사이토제네스의 orfZ 도메인으로 유전자 카세트를 도입함으로써 생성되었다(도 1a). hly 프로모터는, hly 신호 서열 및 HPV-16 E7이 뒤따르는 LLO의 처음 5 개 아미노산(AA)의 발현을 구동한다. (도 1b), Lm-LLO-E7은 prfA-균주 XFL-7을 플라스미드 pGG-55로 형질전환함으로써 생성되었다. pGG-55는 LLO-E7의 비용혈성 융합의 발현을 구동하는 hly 프로모터를 갖는다. pGG-55는 또한 생체내 XFL-7에 의한 플라스미드의 보유를 선택하기 위한 prfA 유전자를 포함한다.
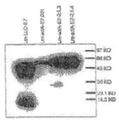
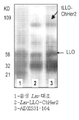
도 2. Lm-E7 및 Lm-LLO-E7은 E7을 분비한다. Lm-Gag(레인 1), Lm-E7(레인 2), Lm-LLO-NP(레인 3), Lm-LLO-E7(레인 4), XFL-7(레인 5), 및 10403S(레인 6)를 37℃에서 Luria-Bertoni 브로스 중에 밤새 성장시켰다. 600 nm 흡광도에서 OD에 의해 결정된 균등 개수의 박테리아를 펠릿 처리하고, 각 상등액 18 ml를 TCA 침전시켰다. 웨스턴 블롯에 의해 E7 발현을 분석하였다. 블롯을 항-E7 mAb, 다음에 HRP-접합된 항-마우스(Amersham)로 탐지한 다음, ECL 검출 시약을 사용하여 발현시켰다.
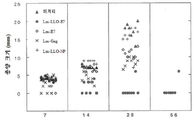
도 3. LLO-E7 융합의 종양 면역요법 효능. 종양-접종 후 7, 14, 21, 28 및 56 일에 마우스에서의 종양 크기가 밀리미터 단위로 도시된다. 미처리(naive) 마우스: 개방-원형; Lm-LLO-E7: 채워진 원형; Lm-E7: 사각형; Lm-Gag: 개방 다이아몬드형; 및 Lm-LLO-NP: 채워진 삼각형.
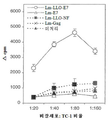
도 4. Lm-LLO-E7-면역화된 마우스로부터의 비장세포는 TC-1 세포에 노출시 증식한다. C57BL/6 마우스를 Lm-LLO-E7, Lm-E7, 또는 대조 rLm 균주로 면역화하고 부스팅하였다. 부스팅 후 6 일째에 비장세포를 수확하고, 방사선 조사된 TC-1 세포를 도시된 비율로 플레이팅하였다. 세포를 3H 티미딘으로 펄스 처리하고 수확하였다. Cpm은 (실험 cpm) - (no-TC-1 대조군)으로서 정의된다.
도 5a 및 5b. (도 5a) Lm-ActA-E7이 E7을 분비하는 것을 보여주는 웨스턴 블롯. 레인 1: Lm-LLO-E7; 레인 2: Lm-ActA-E7.001; 레인 3; Lm-ActA-E7-2.5.3; 레인 4: Lm-ActA-E7-2.5.4. (도 5b) Lm-ActA-E7(직사각형), Lm-E7(타원형), Lm-LLO-E7(X)를 투여한 마우스 및 미처리 마우스(비-백신접종; 채워진 삼각형)에서의 종양 크기.
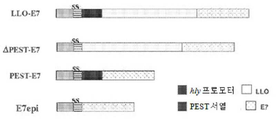
도 6a-6c. (도 6a) 4 LM 백신을 생성하기 위해 사용되는 플라스미드 삽입체의 개략도. Lm-LLO-E7 삽입체는 사용된 리스테리아 유전자 모두를 포함한다. 이는 hly 프로모터, hly 유전자의 처음 1.3 kb(단백질 LLO를 암호화함), 및 HPV-16 E7 유전자를 포함한다. hly의 처음 1.3 kb는 신호 서열(ss) 및 PEST 영역을 포함한다. Lm-PEST-E7은 hly 프로모터, 신호 서열, PEST 및 E7 서열을 포함하지만 절단된 LLO 유전자의 나머지는 배제한다. Lm-ΔPEST-E7은 PEST 영역은 배제하지만, hly 프로모터, 신호 서열, E7, 및 절단된 LLO의 나머지는 포함한다. Lm-E7epi는 hly 프로모터, 신호 서열 및 E7만을 포함한다. (도 6b) 상부 패널: PEST 영역을 포함하는 리스테리아 구성체는 종양 퇴행을 유도한다. 하부 패널: 2 개의 개별 실험에서 종양 접종-후 28 일째의 평균 종양 크기. (도 6c) PEST 영역을 포함하는 리스테리아 구성체는 비장에서 더 높은 백분율의 E7-특이적 림프구를 유도한다. 3 개 실험으로부터의 데이터의 평균 및 SE가 도시된다.
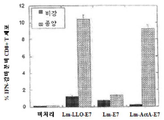
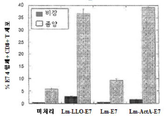
도 7a 및 7b. (도 7a) TC-1 종양 세포 투여 후 Lm-E7, Lm-LLO-E7, Lm-ActA-E7을 투여하거나 백신을 투여하지 않은(미처리) 마우스에서, 비장에서의 E7-특이적 IFN-감마-분비 CD8+ T 세포의 유도 및 종양을 침투한 수. (도 7b) (도 7a)에서 기술한 마우스의 비장 및 종양에서 E7 특이적 CD8+ 세포의 유도 및 침투.
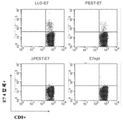
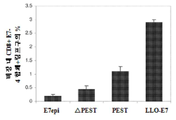
도 8a 및 8b. PEST 영역을 포함하는 리스테리아 구성체는 종양 내에서 더 높은 백분율의 E7-특이성 림프구를 유도한다. (도 8a) 실험 1로부터의 대표적인 데이터. (도 8b) 모든 3 회 실험으로부터의 데이터의 평균 및 SE.
도 9. 실시예 6에 제시된 임상 시험의 환자에서 관찰된 효능을 나타내는 집단 1 및 2로부터의 데이터.
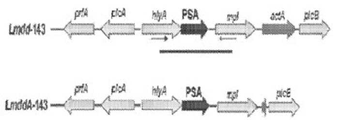
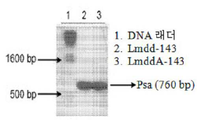
도 10a 및 10b. (도 10a) klk3 통합 및 actA 결실 후 Lmdd-143 및 LmddA-143의 염색체 영역의 개략적 도시; (도 10b) klk3 유전자는 Lmdd 및 LmddA 염색체로 통합된다. klk3 특이적 프라이머를 사용하는 각 구성체로부터 염색체 DNA 제조에서 PCR은 야생형 단백질의 분비 신호 서열이 결여된 klk3 유전자에 해당하는 714 bp 밴드를 증폭시킨다.
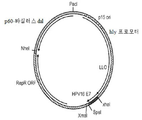
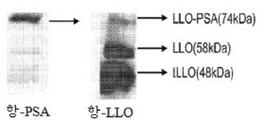
도 11a-11d. (도 11a) pADV134 플라스미드의 유전자 지도. (도 11b) LmddA-134 배양 상등액으로부터 얻은 단백질이 침전되고 SDS-PAGE에서 분리되고, LLO-E7 단백질은 항-E7 단클론 항체를 사용하여 웨스턴-블롯으로 검출된다. 항원 발현 카세트는 hly 프로모터, 절단된 LLO를 위한 ORF 및 인간 PSA 유전자(klk3)로 구성된다. (도 11c) pADV134 플라스미드의 유전자 지도. (도 11d) 웨스턴 블로팅에서는 항-PSA 및 항-LLO 항체를 사용하여 LLO-PSA 융합 단백질의 발현을 보여주었다.
도 12a 및 12b. (도 12a) 선택 압력(D-알라닌) 유무에 따른 LmddA-LLO-PSA의 배양시 시험관내 플라스미드 안정성. 먼저 균주 및 배양 조건을 수록하고 CFU 결정을 위해 사용되는 플레이트를 다음에 수록한다. (도 12b) LmddA-LLO-PSA 생체내 제거율(clearance) 및 이때 잠재적 플라스미드 손실의 평가. 박테리아를 정맥내 주사하고 표시된 시점에서 비장으로부터 분리하였다. CFU를 BHI 및 BHI + D-알라닌 플레이트에서 결정하였다.
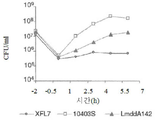
도 13a 및 13b. (도 13a) C57BL/6 마우스에 108 CFU를 투여한 후 균주 LmddA-LLO-PSA의 생체내 제거율. BHI/str 플레이트 상에 접종하여 CFU 수를 결정하였다. 이 방법의 검출 한계는 100 CFU였다. (도 13b) 10403S, LmddA-LLO-PSA 및 XFL7 균주를 이용한 J774 세포의 세포 감염 분석.
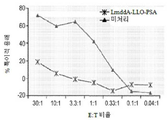
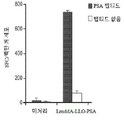
도 14a-14e. (도 14a) 부스터 투여(booster dose) 후 6 일째에 미처리 및 LmddA-LLO-PSA로 면역화된 마우스의 비장세포에서의 PSA 4합체-특이적 세포. (도 14b) 미처리 및 LmddA-LLO-PSA로 면역화된 마우스의 비장세포에서 IFN-γ에 대한 세포내 사이토카인 염색을 PSA 펩티드로 5 시간 동안 촉진시켰다. 카스파제 기반의 분석(도 14c) 및 유로퓸 기반의 분석(도 14d)을 사용하여 상이한 효과기/표적 비율에서 LmddA-LLO-PSA로 면역화된 마우스 및 미처리 마우스로부터 얻은 시험관내 자극된 주효 T 세포를 이용한 PSA 펩티드로 펄스 자극받은(pulsed) EL4 세포의 특이적 용해. PSA 펩티드의 존재 또는 비존재 중 24 시간 동안 자극 후 얻어진 미처리 및 면역화된 비장세포에서의 IFNγ 스폿의 수(도 14e).
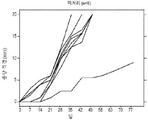
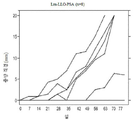
도 15a-15c. LmddA-142로의 면역화는 Tramp-C1-PSA(TPSA) 종양의 퇴행(regression)을 유도한다. 마우스를 비처치 상태로 두거나(n=8)(도 15a) 7, 14 및 21 일째에 LmddA-142(1x10⁸ CFU/마우스)(n=8)(도 15b) 또는 Lm-LLO-PSA(n=8)(도 15c)로 복강내 면역화하였다. 종양 크기는 각각의 개별 종양에 대해 측정되었으며 이 값을 밀리미터 단위의 평균 직경으로 표시하였다. 각 라인은 개별 마우스를 나타낸다.
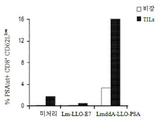
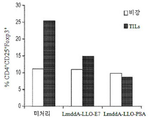
도 16a 및 16b. (도 16a) 비처치 마우스 및 Lm 대조 균주 또는 Lm- ddA-LLO-PSA(LmddA-142)의 어느 하나로 면역화된 마우스의 비장 및 침윤성 T-PSA-23 종양에서 PSA-4합체+CD8+ T 세포의 분석. (도 16b) 비처치 마우스 및 Lm 대조 균주 또는 Lm- ddA-LLO-PSA의 어느 하나로 면역화된 마우스의 비장 및 침윤성 T-PSA-23 종양에서 CD25+FoxP3+로 정의되는 CD4+ 조절 T 세포의 분석.
도 17a 및 17b. (도 17a) klk3 통합 및 actA 결실 후 Lmdd-143 및 LmddA-143의 염색체 영역의 개략적 도시; (도 17b) klk3 유전자는 Lmdd 및 LmddA 염색체로 통합된다. klk3 특이적 프라이머를 사용한 각 구성체의 염색체 DNA 제조로부터의 PCR은 klk3 유전자에 해당하는 760 bp 밴드를 증폭한다.
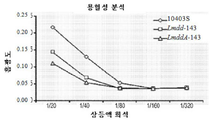
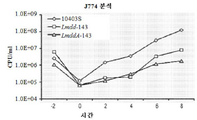
도 18a-c. (도 18a) Lmdd-143 및 LmddA-143은 LLO-PSA 단백질을 분비한다. 박테리아 배양 상등액에서 얻은 단백질을 침전시켜 SDS-PAGE로 분리하고, LLO 및 LLO-PSA 단백질을 항-LLO 및 항-PSA 항체를 사용하여 웨스턴-블롯으로 검출한다; (도 18b) Lmdd-143 및 LmddA-143에 의해 생산된 LLO는 용혈 활성을 보유한다. 양(sheep)의 적혈구를 박테리아 배양 상등액의 연속 희석액(serial dilutions)에서 배양하고 590 nm 흡광도로 용혈 활성을 측정하였다; (도 18c) Lmdd-143 및 LmddA-143을 마크로파지-유사 J774 세포 내에서 성장시켰다. J774 세포를 박테리아와 함께 1 시간 동안 배양한 후 겐타마이신 처리로 세포외 박테리아를 사멸하였다. 표시된 시점에서 얻은 J774 용해물의 연속 희석액을 접종하여 세포내 성장을 측정하였다. 이들 실험에서 Lm 10403S가 대조군으로 사용되었다.
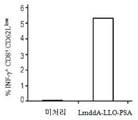
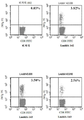
도 19. Lmdd-143 및 LmddA-143를 사용한 마우스의 면역화는 PSA-특이적 면역 반응을 유도한다. C57BL/6 마우스를 1 주일 간격으로 2 회 1x10⁸ CFU의 Lmdd-143, LmddA-143 또는 LmddA-142로 면역화하고, 7 일 후 비장을 수확하였다. 비장세포를 모넨신(monensin)의 존재 중 5 시간 동안 1 μM의 PSA65 -74 펩티드로 자극하였다. CD8, CD3, CD62L 및 세포내 IFN-γ에 대해 세포를 염색하고 FACS Calibur 세포측정기로 분석하였다.
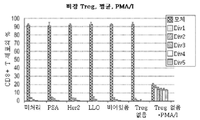
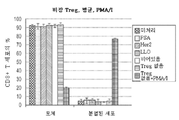
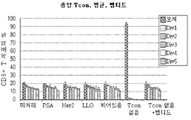
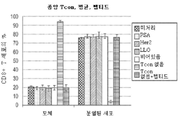
도 20a 및 20b. 도면에서는 종양에서 MDSC 및 Treg의 저하를 보여준다. Lm 백신접종(LmddA-PSA 및 LmddA-E7) 후 MDSC(도 20b) 및 Treg(도 20a)의 개수.
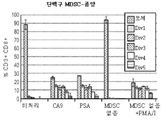
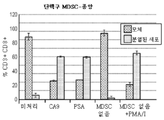
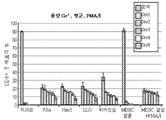
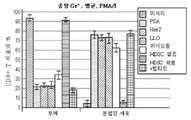
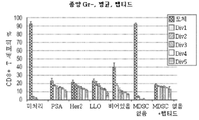
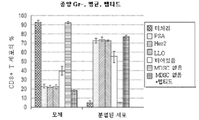
도 21a-21d. 도면에서는 TPSA23 종양(PSA 발현 종양)으로부터의 단핵구 MDSC가 리스테리아 백신접종 후 덜 억제성임을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 PSA-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 21a 및 21b에서 포르볼-미리스테이트-아세테이트(Phorbol-Myristate-Acetate) 및 이오노마이신(PMA/I)은 비-특이적 자극을 나타낸다. 도 21c 및 21d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 21a 및 21c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 21b 및 21d는 풀링된 분열 주기를 보여준다.
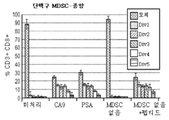
도 22a- 22d는리스테리아가 비장의 단핵구 MDSC에 효과가 없으며 이들이 항원-특이적 방식으로만 억제함을 입증하는 억제제 분석 데이터를 보여준다. 도 22a 및 22b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 22c 및 22d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 22a 및 22c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 22b 및 22d는 풀링된 분열 주기를 보여준다.
도 23a-23d는 종양으로부터의 과립구 MDSC가 리스테리아 백신접종 후 T 세포를 억제하는 능력의 감소가 있음을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 PSA-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 23a 및 23b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 23c 및 23d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 23a 및 23c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 23b 및 23d는 풀링된 백분율 분열을 보여준다.
도 24a-24d는 리스테리아가 비장 과립구 MDSC에서 효과가 없으며 이들은 항원-특이적 방식으로만 억제성이 있음을 입증하는 억제 분석 데이터를 보여준다. 도 24a 및 24b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 24c 및 24d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 24a 및 24c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 24b 및 24d는 풀링된 백분율 분열을 보여준다.
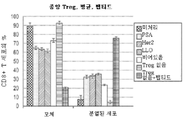
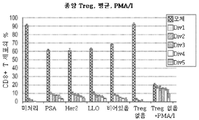
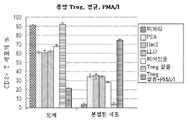
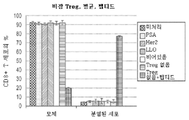
도 25a-25d는 종양으로부터의 Treg가 여전히 억제성임을 입증하는 억제 분석 데이터를 보여준다. 이 종양 모델에서, 비-항원 특이적 방식으로 Treg의 억제 능력에 약간의 감소가 있다. 도 25a 및 25b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 25c 및 25d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 Treg의 부재 중 자극된 세포의 분열을 보여준다. 도 25a 및 25c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 25b 및 25d는 풀링된 백분율 분열을 보여준다.
도 26a-26d는 비장의 Treg가 여전히 억제성임을 입증하는 억제 분석 데이터를 보여준다. 도 26a 및 26b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 26c 및 26d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 Treg의 부재 중 자극된 세포의 분열을 보여준다. 도 26a 및 26c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 26b 및 26d는 풀링된 백분율 분열을 보여준다.
도 27a-27d는 통상적인 CD4+ T 세포가 이들이 마우스의 종양 또는 비장에서 발견되는지 여부와 관계없이 세포 분열에 영향이 없음을 입증하는 억제 분석 데이터를 보여준다. 도 27a 및 27b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 27c 및 27d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 Treg의 부재 중 자극된 세포의 분열을 보여준다. 도 27c-27d는 풀링된 백분율 분열로부터의 데이터를 보여준다.
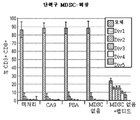
도 28a-28d는 4T1 종양(Her2 발현 종양)으로부터의 단핵구 MDSC가 리스테리아 백신접종 후 저하된 억제 능력을 가짐을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 Her2/neu-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 28a 및 28b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 28c 및 28d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 28a 및 28c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 28b 및 28d는 풀링된 백분율 분열을 보여준다.
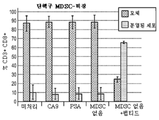
도 29a-29d는 비장의 단핵구 MDSC에서 리스테리아-특이적 효과가 없음을 입증하는 억제 분석 데이터를 보여준다. 도 29a 및 29b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 29c 및 29d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 29a 및 29c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 29b 및 29d는 풀링된 백분율 분열을 보여준다.
도 30a-30d는 4T1 종양(Her2 발현 종양)으로부터의 과립구 MDSC가 리스테리아 백신접종 후 저하된 억제 능력을 가짐을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 Her2/neu-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 30a 및 30b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 30c 및 30d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 30a 및 30c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 30b 및 30d는 풀링된 백분율 분열을 보여준다.
도 31a-31d는 비장의 과립구 MDSC 상의 리스테리아-특이적 효과가 없음을 입증하는 억제 분석 데이터를 보여준다. 도 31a 및 31b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 31c 및 31d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 31a 및 31c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 31b 및 31d는 풀링된 백분율 분열을 보여준다.
도 32a-32d는 리스테리아 백신접종 후 4T1 종양(Her2 발현 종양)으로부터의 Treg의 억제 능력에서의 저하를 입증하는 억제 분석 데이터를 제시한다. 도 32a 및 32b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 32c 및 32d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 억제 능력에서의 변화가 Her2/neu-특이적 및 비-특이적 응답체 T 세포에서도 보였으므로 이 감소는 항원 특이적이 아니다. 도 32a 및 32c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 32b 및 32d는 풀링된 백분율 분열을 보여준다.
도 33a-33d는 비장의 Treg 상의 리스테리아-특이적 효과가 없음을 입증하는 억제 분석 데이터를 보여준다. 응답체 T 세포는 이들이 항원 특이적이든지 아니든지 상관없이, 모두 분열이 가능하다. 도 33a 및 33b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 33c 및 33d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. 도 33a 및 33c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 33b 및 33d는 풀링된 백분율 분열을 보여준다.
도 34a-34d는 과립구 MDSC의 억제 능력이 tLLO의 과발현에 기인한 것이며 파트너화 융합 항원과는 무관함을 입증하는 억제 분석 데이터를 보여준다. 좌측 패널(도 34a 및 34c)은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측 패널(도 34b 및 34d)은 풀링된 백분율 분열을 보여준다.
도 35a-35d는 단핵구 MDSC의 억제 능력이 tLLO의 과발현에 기인한 것이며 파트너화 융합 항원과는 무관함을 입증하는 억제 분석 데이터를 보여준다. 좌측 패널(도 35a 및 35c)은 각 그룹에서 개별 세포 분열 주기를 보여준다. 우측 패널(도 35b 및 35d)은 풀링된 백분율 분열을 보여준다.
도 36a-36d는 비장으로부터 정제된 과립구 MDSC가 Lm 백신접종 후 항원-특이적 응답체 T 세포의 분열을 억제하는 이들의 능력을 유지함을 입증하는 억제 분석 데이터를 보여준다(도 34a 및 34b). 그러나, 비-특이적 자극 후, 활성화된 T 세포(PMA/이오노마이신으로)는 여전히 분열할 수 있다(도 36c 및 36d). 좌측-패널은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측-패널은 풀링된 백분율 분열을 보여준다.
도 37a-37d는 비장으로부터 정제된 단핵구 MDSC가 Lm 백신접종 후 항원-특이적 응답체 T 세포의 분열을 억제하는 이들의 능력을 유지함을 입증하는 억제 분석 데이터를 보여준다(도 37a 및 37b). 그러나, 비-특이적 활성화 후(PMA/이오노마이신으로 자극됨), T 세포는 여전히 분열할 수 있다(도 37c 및 37d). 좌측-패널은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측-패널은 풀링된 백분율 분열을 보여준다.
도 38a-38d는 임의의 Lm-처리된 그룹의 종양으로부터 정제된 Treg이, 응답체 세포가 항원 특이적(도 38a 및 38b) 또는 비-특이적으로(도 38c 및 38d) 활성화되는지와 무관하게 응답체 T 세포의 분열을 억제하는 능력이 약간 감소됨을 입증하는 억제 분석 데이터를 보여준다. 좌측-패널은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측-패널은 풀링된 백분율 분열을 보여준다.
도 39a-39d는 비장으로부터 정제된 Treg가 항원 특이적(도 39a-39b) 및 비-특이적으로(도 39c 및 39d) 활성화된 응답체 T 세포 둘 다의 분열을 여전히 억제할 수 있음을 입증하는 억제 분석 데이터를 보여준다.
도 40a-40d는 응답체 세포가 항원 특이적(도 40a 및 40b) 또는 비-특이적으로 활성화(도 40c 및 40d)되는지와 무관하게, 종양 Tcon 세포가 T 세포의 분열을 억제할 수 없음을 입증하는 억제 분석 데이터를 보여준다.
도 41a-41d는 응답체 세포가 항원 특이적(도 41a 및 41b) 또는 비-특이적으로 활성화(도 41c 및 41d)되는지와 무관하게, 비장 Tcon 세포가 T 세포의 분열을 억제할 수 없음을 입증하는 억제 분석 데이터를 보여준다.
도 42a-42c. (도 42a) 항-OX40 항체와의 조합 리스테리아-기반 백신(ADXS11-001, 이것은 Lm-LLO-E7임)을 받는 마우스에 대한 처치 계획의 도식으로, 여기에서 종양 성장 및 마우스 생존이 실험 내내 모니터링되었다. (도 42b) 항-OX40 항체와의 조합 리스테리아-기반 백신(ADXS11-001, 이것은 Lm-LLO-E7임)을 받는 마우스에 대한 처치 계획의 도식으로, 여기에서 종양 성장 및 마우스 생존이 실험 내내 모니터링되었다. (도 42a) 및 (도 42b) 둘 다에서 0 일째 마우스에 종양 형성을 개시시키기 위해 7 x 10⁵ TC-1 종양 세포를 주사하였다. 백신접종은 10 일째에 시작하였다. 대조군은 LmddA-LLO 및 리스테리아 균주 XFL7를 포함하였다. (도 42a)는 항-OX40 항체가 실험의 시기에 걸쳐 주 2 회 투여된 것을 보여준다. (도 42b)는 항-GITR 항체가 주 2 회 총 3 용량으로 투여된 것을 보여준다. (도 42c)는 비처치(NT)를 포함하여 12 가지 투여 요법을 확인한다.
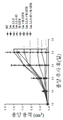
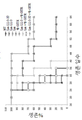
도 43a-b. TC-1 종양을 C57BL/6 마우스의 복부에 피하(s.c.) 이식하였다. 종양 용적이 약 0.06 ㎤에 도달했을 때, 2 용량의 Lm 기반 E7 특이적 종양 백신(1x10⁸ 콜로니-형성 단위/마우스)을 7 일 간격으로 복강내(i.p.) 투여하였다. GITR(5 mg/Kg b.wt.; 총 4 용량) 및 OX40(1 mg/Kg b.wt.; 실험 전체에 걸쳐) 항체를 백신과 함께 시작하여 주 2 회 i.p. 주사하였다. 종양 크기를 매주 2 회 측정하였다. 종양 성장(도 43a) 및 생존 백분율(도 43b)을 보여준다. N=5/그룹. 결과는 하나의 대표적 실험으로부터 평균 ± SE로서 보여준다. 실험은 2 회 반복하였다. *p≥0.05, **p≥0.01, ****p≥0.0001.
도 44a- b. TC-1 종양을 C57BL/6 마우스의 복부에 피하(s.c.) 이식하였다. 종양 용적이 약 0.06 ㎤에 도달했을 때, 2 용량의 Lm 기반 E7 특이적 종양 백신(1x10⁸ 콜로니-형성 단위/마우스)을 7 일 간격으로 복강내(i.p.) 투여하였다. OX40(1 mg/Kg b.wt.; 실험 전체에 걸쳐) 항체를 백신과 함께 시작하여 주 2 회 i.p. 주사하였다. 종양 크기를 매주 2 회 측정하였다. 종양 성장(도 44a) 및 생존 백분율(도 44b)을 보여준다. N=5/그룹. 결과는 하나의 대표적 실험으로부터 평균 ± SE로서 보여준다. 실험은 2 회 반복하였다. *p≥0.05, **p≥0.01, ****p≥0.0001.
도 45. 리스테리아-기반 백신 요법과 조합 항-GITR Ab에 대한 백신 투여 조사의 도식.
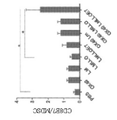
도 46a 및 46b. 도 46a는 상이한 치료 그룹에 따른 종양-침윤 CD4+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 46b는 상이한 치료 그룹에 따른 종양-침윤 Treg(CD4+FoxP3+) 세포의 개수를 보여주는 막대 그래프를 제시한다.
도 47a 및 47b. 도 47a는 상이한 치료 그룹에 따른 종양-침윤 총 비 Treg(CD4+FoxP3-) 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 47b는 상이한 치료 그룹에 따른 종양-침윤 Treg FoxP3+의 CD4+ 세포의 백분율을 보여주는 막대 그래프를 제시한다.
도 48a 및 48b. 도 48a는 상이한 치료 그룹에 따른 종양-침윤 CD8+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 48b는 상이한 치료 그룹에 따른 종양-침윤 E7-특이적 CD8+ T 세포(항원 특이적)의 개수를 보여주는 막대 그래프를 제시한다.
도 49a 및 49b. 도 49a는 상이한 치료 그룹에 따른, CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다. 도 49b는 상이한 치료 그룹에 따른, E7+CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다.
도 50a, 50b 및 50c. 도 50a는 상이한 치료 그룹에 따른 종양-침윤 골수-유래 억제 세포(MDSC)의 개수를 보여주는 막대 그래프를 제시한다. 도 50b는 상이한 치료 그룹에 따른, 종양-침윤 CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다. 도 50c는 상이한 치료 그룹에 따른, 항원 특이적 종양-침윤 E7-CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다.
도 51. 리스테리아-기반 백신 요법과 조합 항-OX40 Ab에 대한 백신 투여 조사의 도식.
도 52a 및 52b. 도 52a는 상이한 치료 그룹에 따른 종양-침윤 CD4+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 52b는 상이한 치료 그룹에 따른 종양-침윤 Treg(CD4+FoxP3+) 세포의 개수를 보여주는 막대 그래프를 제시한다.
도 53a 및 53b. 도 53a는 상이한 치료 그룹에 따른 종양-침윤 총 비 Treg(CD4+FoxP3-) 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 53b는 상이한 치료 그룹에 따른 종양-침윤 Treg FoxP3+의 CD4+ 세포의 백분율을 보여주는 막대 그래프를 제시한다.
도 54a 및 54b. 도 54a는 상이한 치료 그룹에 따른 종양-침윤 CD8+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 54b는 상이한 치료 그룹에 따른 종양-침윤 E7-특이적 CD8+ T 세포(항원 특이적)의 개수를 보여주는 막대 그래프를 제시한다.
도 55a 및 55b. 도 55a는 상이한 치료 그룹에 따른, CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다. 도 55b는 상이한 치료 그룹에 따른, E7+CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다.
도 56a, 56b 및 56c. 도 56a는 상이한 치료 그룹에 따른 종양-침윤 골수-유래 억제 세포(MDSC)의 개수를 보여주는 막대 그래프를 제시한다. 도 56b는 상이한 치료 그룹에 따른, 종양-침윤 CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다. 도 56c는 상이한 치료 그룹에 따른, 항원 특이적 종양-침윤 E7-CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다.
도 57a 및 57b. ADXS31-164의 제작 (도 57a) LmddA 균주에서 염색체 dal -dat 결실의 보완을 위한 구성적 리스테리아 p60 프로모터의 조절 하에서 바실러스 서브틸리스 dal 유전자를 갖는 pAdv164의 플라스미드 맵. 이는 또한 절단된 LLO(1-441)가, 3개 단편인 Her2/neu: EC1(aa 40-170), EC2(aa 359-518) 및 ICI(aa 679-808)의 직접 융합에 의해 제작된 키메라 인간 Her2/neu 유전자로 융합하는 것을 포함한다. (도 57b) tLLO-ChHer2의 발현 및 분비는 항-LLO 항체로 블롯팅된 TCA 침전 세포 배양 상등액의 웨스턴 블롯 분석에 의해 Lm-LLO-ChHer2 (Lm-LLO-138) 및 LmddA-LLO-ChHer2 (ADXS31-164)에서 검출되었다. ~104 KD의 차등 밴드는 tLLO-ChHer2에 상응한다. 내인성 LLO는 58 KD 밴드로서 검출된다. 리스테리아 대조군은 ChHer2 발현이 결여되었다.
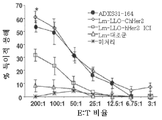
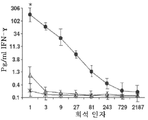
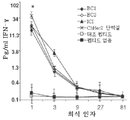
도 58a-58c. ADXS31-164의 면역원성 특성(도 58a) 면역화된 마우스로부터의 비장세포에서 Her2/neu 리스테리아-기반 백신에 의해 유발된 세포독성 T 세포 반응은 자극제로서 NT-2 세포 및 표적으로서 3T3/neu 세포를 사용하여 테스트되었다. Lm-대조는 모든 방면에서 동일하지만 비관련 항원(HPV16-E7)을 발현하는 LmddA 백그라운드를 기반으로 하였다. (도 58b) 면역화된 FVB/N 마우스로부터의 비장세포에 의해 세포 배양 배지 내로 분비된 IFN-γ는 미토마이신 C 처리된 NT-2 세포의 시험관내 자극 24시간 후에 ELISA로 측정되었다. (도 58c) 단백질의 상이한 영역으로부터의 펩티드와의 시험관내 인큐베이션에 반응하여 키메라 백신으로 면역화된 HLA-A2 형질전환 마우스로부터의 비장세포에 의한 IFN-γ 분비. 재조합 ChHer2 단백질이 양성 대조군으로서 사용되었고, 비관련 펩티드 또는 펩티드가 없는 그룹이 도면 설명에 열거된 바와 같이 음성 대조군을 구성하였다. IFN-γ 분비는 공동-인큐베이션 72 시간 후에 수확된 세포 배양 상등액을 사용한 ELISA 분석에 의해 검출되었다. 각 데이터 포인트는 삼중 데이터 +/- 표준 오차의 평균이었다. * P 값 < 0.001.
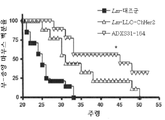
도 59. 리스테리아-ChHer2/neu 백신에 대한 종양 예방 연구 Her2/neu 형질전환 마우스는 각각 재조합 리스테리아-ChHer2 또는 대조 리스테리아 백신으로 6 회 주입되었다. 면역화는 6 주령에 개시되었고 21 주까지 매 3주마다 지속하였다. 종양의 외관을 매주 모니터링하였고 종양이 없는 마우스의 백분율로서 표현하였다. *p < 0.05, 그룹 당 N = 9.
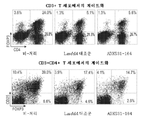
도 60. 비장에서 Treg의 %에 대한 ADXS31-164 면역화의 효과. FVB/N 마우스는 1 x 10⁶ NT-2 세포로 s.c. 접종되었고 1 주 간격으로 각각의 백신으로 3 회 면역화되었다. 비장은 2 차 면역화 후 7 일째에 수확하였다. 면역 세포의 분리 후, 이들을 Treg의 검출을 위해 항 CD3, CD4, CD25 및 FoxP3 항체로 염색하였다. 상이한 치료 그룹에 걸쳐 전체 CD3+ 또는 CD3+CD4+ T 세포의 백분율로서 표시되는, CD25+/FoxP3+ T 세포의 빈도를 보여주는 대표적인 실험으로부터의 Treg의 점-플롯.
도 61a 및 61b. NT-2 종양에서 종양 침윤 Treg의 %에 대한 ADXS31-164 면역화의 효과. FVB/N 마우스는 1 x 10⁶ NT-2 세포로 s.c. 접종되었고 1 주 간격으로 각각의 백신으로 3 회 면역화되었다. 종양은 2차 면역화 후 7 일째에 수확하였다. 면역 세포의 분리 후, 이들을 Treg의 검출을 위해 항 CD3, CD4, CD25 및 FoxP3 항체로 염색하였다. (도 61a ). 대표적 실험으로부터 Treg의 점-플롯. 도 61b. 상이한 처치 그룹에 걸쳐 총 CD3+ 또는 CD3+CD4+ T 세포의 백분율(좌측 패널) 및 종양내 CD8/Treg 비율(우측 패널)로서 표현되는, CD25+/FoxP3+ T 세포의 빈도. 데이터는 2 회의 독립 실험으로부터 수득된 평균 ± SEM으로 나타낸다.
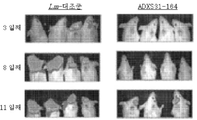
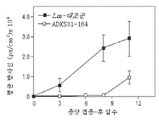
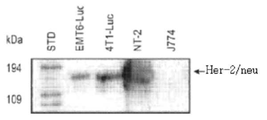
도 62a-62c. ADXS31-164의 백신접종은 뇌에서의 유방암 세포주의 성장을 지연시킬 수 있다. Balb/c 마우스는 ADXS31-164 또는 대조 리스테리아 백신으로 3 회 면역화하였다. EMT6-Luc 세포(5,000)를 마취된 마우스에 두개내 주입하였다. (도 62a) 마우스의 생체외 이미지화는 Xenogen X-100 CCD 카메라를 사용하여 표시된 일자에 실시되었다. (도 62b) 픽셀 밀도는 표면적 cm2 당 초 당 광자 수를 그래프로 나타냈고; 이는 평균 방사 휘도로 표시된다. (도 62c) EMT6-Luc 세포, 4T1-Luc 및 NT-2 세포주에 의한 Her2/neu의 발현은 항-Her2/neu 항체를 사용하여, 웨스턴 블롯으로 검출되었다. 뮤린 대식세포 유사 세포주인 J774.A2 세포를 음성 대조로 사용하였다.
도 63. 미리 설정된 FVB/N Her2/neu, NT-2 종양 마우스 모델에 대한 처치 계획을 보여준다.
예시의 단순성 및 명확성을 위해, 도면에 도시된 요소가 반드시 일정한 비율로 도시된 것은 아님이 인정될 것이다. 예를 들어, 요소의 일부 치수는 명확성을 위해 다른 요소에 비해 과장될 수도 있다. 또한, 적절하다고 인정되는 경우, 참조 번호는 대응하거나 유사한 요소를 나타내기 위해 도면 사이에 반복될 수도 있다.
도 1a 및 1b. Lm-E7 및 Lm-LLO-E7(ADXS11-001)는 E7을 발현 및 분비하도록 상이한 발현 시스템을 사용한다. Lm-E7은 L. 모노사이토제네스의 orfZ 도메인으로 유전자 카세트를 도입함으로써 생성되었다(도 1a). hly 프로모터는, hly 신호 서열 및 HPV-16 E7이 뒤따르는 LLO의 처음 5 개 아미노산(AA)의 발현을 구동한다. (도 1b), Lm-LLO-E7은 prfA-균주 XFL-7을 플라스미드 pGG-55로 형질전환함으로써 생성되었다. pGG-55는 LLO-E7의 비용혈성 융합의 발현을 구동하는 hly 프로모터를 갖는다. pGG-55는 또한 생체내 XFL-7에 의한 플라스미드의 보유를 선택하기 위한 prfA 유전자를 포함한다.
도 2. Lm-E7 및 Lm-LLO-E7은 E7을 분비한다. Lm-Gag(레인 1), Lm-E7(레인 2), Lm-LLO-NP(레인 3), Lm-LLO-E7(레인 4), XFL-7(레인 5), 및 10403S(레인 6)를 37℃에서 Luria-Bertoni 브로스 중에 밤새 성장시켰다. 600 nm 흡광도에서 OD에 의해 결정된 균등 개수의 박테리아를 펠릿 처리하고, 각 상등액 18 ml를 TCA 침전시켰다. 웨스턴 블롯에 의해 E7 발현을 분석하였다. 블롯을 항-E7 mAb, 다음에 HRP-접합된 항-마우스(Amersham)로 탐지한 다음, ECL 검출 시약을 사용하여 발현시켰다.
도 3. LLO-E7 융합의 종양 면역요법 효능. 종양-접종 후 7, 14, 21, 28 및 56 일에 마우스에서의 종양 크기가 밀리미터 단위로 도시된다. 미처리(naive) 마우스: 개방-원형; Lm-LLO-E7: 채워진 원형; Lm-E7: 사각형; Lm-Gag: 개방 다이아몬드형; 및 Lm-LLO-NP: 채워진 삼각형.
도 4. Lm-LLO-E7-면역화된 마우스로부터의 비장세포는 TC-1 세포에 노출시 증식한다. C57BL/6 마우스를 Lm-LLO-E7, Lm-E7, 또는 대조 rLm 균주로 면역화하고 부스팅하였다. 부스팅 후 6 일째에 비장세포를 수확하고, 방사선 조사된 TC-1 세포를 도시된 비율로 플레이팅하였다. 세포를 3H 티미딘으로 펄스 처리하고 수확하였다. Cpm은 (실험 cpm) - (no-TC-1 대조군)으로서 정의된다.
도 5a 및 5b. (도 5a) Lm-ActA-E7이 E7을 분비하는 것을 보여주는 웨스턴 블롯. 레인 1: Lm-LLO-E7; 레인 2: Lm-ActA-E7.001; 레인 3; Lm-ActA-E7-2.5.3; 레인 4: Lm-ActA-E7-2.5.4. (도 5b) Lm-ActA-E7(직사각형), Lm-E7(타원형), Lm-LLO-E7(X)를 투여한 마우스 및 미처리 마우스(비-백신접종; 채워진 삼각형)에서의 종양 크기.
도 6a-6c. (도 6a) 4 LM 백신을 생성하기 위해 사용되는 플라스미드 삽입체의 개략도. Lm-LLO-E7 삽입체는 사용된 리스테리아 유전자 모두를 포함한다. 이는 hly 프로모터, hly 유전자의 처음 1.3 kb(단백질 LLO를 암호화함), 및 HPV-16 E7 유전자를 포함한다. hly의 처음 1.3 kb는 신호 서열(ss) 및 PEST 영역을 포함한다. Lm-PEST-E7은 hly 프로모터, 신호 서열, PEST 및 E7 서열을 포함하지만 절단된 LLO 유전자의 나머지는 배제한다. Lm-ΔPEST-E7은 PEST 영역은 배제하지만, hly 프로모터, 신호 서열, E7, 및 절단된 LLO의 나머지는 포함한다. Lm-E7epi는 hly 프로모터, 신호 서열 및 E7만을 포함한다. (도 6b) 상부 패널: PEST 영역을 포함하는 리스테리아 구성체는 종양 퇴행을 유도한다. 하부 패널: 2 개의 개별 실험에서 종양 접종-후 28 일째의 평균 종양 크기. (도 6c) PEST 영역을 포함하는 리스테리아 구성체는 비장에서 더 높은 백분율의 E7-특이적 림프구를 유도한다. 3 개 실험으로부터의 데이터의 평균 및 SE가 도시된다.
도 7a 및 7b. (도 7a) TC-1 종양 세포 투여 후 Lm-E7, Lm-LLO-E7, Lm-ActA-E7을 투여하거나 백신을 투여하지 않은(미처리) 마우스에서, 비장에서의 E7-특이적 IFN-감마-분비 CD8+ T 세포의 유도 및 종양을 침투한 수. (도 7b) (도 7a)에서 기술한 마우스의 비장 및 종양에서 E7 특이적 CD8+ 세포의 유도 및 침투.
도 8a 및 8b. PEST 영역을 포함하는 리스테리아 구성체는 종양 내에서 더 높은 백분율의 E7-특이성 림프구를 유도한다. (도 8a) 실험 1로부터의 대표적인 데이터. (도 8b) 모든 3 회 실험으로부터의 데이터의 평균 및 SE.
도 9. 실시예 6에 제시된 임상 시험의 환자에서 관찰된 효능을 나타내는 집단 1 및 2로부터의 데이터.
도 10a 및 10b. (도 10a) klk3 통합 및 actA 결실 후 Lmdd-143 및 LmddA-143의 염색체 영역의 개략적 도시; (도 10b) klk3 유전자는 Lmdd 및 LmddA 염색체로 통합된다. klk3 특이적 프라이머를 사용하는 각 구성체로부터 염색체 DNA 제조에서 PCR은 야생형 단백질의 분비 신호 서열이 결여된 klk3 유전자에 해당하는 714 bp 밴드를 증폭시킨다.
도 11a-11d. (도 11a) pADV134 플라스미드의 유전자 지도. (도 11b) LmddA-134 배양 상등액으로부터 얻은 단백질이 침전되고 SDS-PAGE에서 분리되고, LLO-E7 단백질은 항-E7 단클론 항체를 사용하여 웨스턴-블롯으로 검출된다. 항원 발현 카세트는 hly 프로모터, 절단된 LLO를 위한 ORF 및 인간 PSA 유전자(klk3)로 구성된다. (도 11c) pADV134 플라스미드의 유전자 지도. (도 11d) 웨스턴 블로팅에서는 항-PSA 및 항-LLO 항체를 사용하여 LLO-PSA 융합 단백질의 발현을 보여주었다.
도 12a 및 12b. (도 12a) 선택 압력(D-알라닌) 유무에 따른 LmddA-LLO-PSA의 배양시 시험관내 플라스미드 안정성. 먼저 균주 및 배양 조건을 수록하고 CFU 결정을 위해 사용되는 플레이트를 다음에 수록한다. (도 12b) LmddA-LLO-PSA 생체내 제거율(clearance) 및 이때 잠재적 플라스미드 손실의 평가. 박테리아를 정맥내 주사하고 표시된 시점에서 비장으로부터 분리하였다. CFU를 BHI 및 BHI + D-알라닌 플레이트에서 결정하였다.
도 13a 및 13b. (도 13a) C57BL/6 마우스에 108 CFU를 투여한 후 균주 LmddA-LLO-PSA의 생체내 제거율. BHI/str 플레이트 상에 접종하여 CFU 수를 결정하였다. 이 방법의 검출 한계는 100 CFU였다. (도 13b) 10403S, LmddA-LLO-PSA 및 XFL7 균주를 이용한 J774 세포의 세포 감염 분석.
도 14a-14e. (도 14a) 부스터 투여(booster dose) 후 6 일째에 미처리 및 LmddA-LLO-PSA로 면역화된 마우스의 비장세포에서의 PSA 4합체-특이적 세포. (도 14b) 미처리 및 LmddA-LLO-PSA로 면역화된 마우스의 비장세포에서 IFN-γ에 대한 세포내 사이토카인 염색을 PSA 펩티드로 5 시간 동안 촉진시켰다. 카스파제 기반의 분석(도 14c) 및 유로퓸 기반의 분석(도 14d)을 사용하여 상이한 효과기/표적 비율에서 LmddA-LLO-PSA로 면역화된 마우스 및 미처리 마우스로부터 얻은 시험관내 자극된 주효 T 세포를 이용한 PSA 펩티드로 펄스 자극받은(pulsed) EL4 세포의 특이적 용해. PSA 펩티드의 존재 또는 비존재 중 24 시간 동안 자극 후 얻어진 미처리 및 면역화된 비장세포에서의 IFNγ 스폿의 수(도 14e).
도 15a-15c. LmddA-142로의 면역화는 Tramp-C1-PSA(TPSA) 종양의 퇴행(regression)을 유도한다. 마우스를 비처치 상태로 두거나(n=8)(도 15a) 7, 14 및 21 일째에 LmddA-142(1x10⁸ CFU/마우스)(n=8)(도 15b) 또는 Lm-LLO-PSA(n=8)(도 15c)로 복강내 면역화하였다. 종양 크기는 각각의 개별 종양에 대해 측정되었으며 이 값을 밀리미터 단위의 평균 직경으로 표시하였다. 각 라인은 개별 마우스를 나타낸다.
도 16a 및 16b. (도 16a) 비처치 마우스 및 Lm 대조 균주 또는 Lm- ddA-LLO-PSA(LmddA-142)의 어느 하나로 면역화된 마우스의 비장 및 침윤성 T-PSA-23 종양에서 PSA-4합체+CD8+ T 세포의 분석. (도 16b) 비처치 마우스 및 Lm 대조 균주 또는 Lm- ddA-LLO-PSA의 어느 하나로 면역화된 마우스의 비장 및 침윤성 T-PSA-23 종양에서 CD25+FoxP3+로 정의되는 CD4+ 조절 T 세포의 분석.
도 17a 및 17b. (도 17a) klk3 통합 및 actA 결실 후 Lmdd-143 및 LmddA-143의 염색체 영역의 개략적 도시; (도 17b) klk3 유전자는 Lmdd 및 LmddA 염색체로 통합된다. klk3 특이적 프라이머를 사용한 각 구성체의 염색체 DNA 제조로부터의 PCR은 klk3 유전자에 해당하는 760 bp 밴드를 증폭한다.
도 18a-c. (도 18a) Lmdd-143 및 LmddA-143은 LLO-PSA 단백질을 분비한다. 박테리아 배양 상등액에서 얻은 단백질을 침전시켜 SDS-PAGE로 분리하고, LLO 및 LLO-PSA 단백질을 항-LLO 및 항-PSA 항체를 사용하여 웨스턴-블롯으로 검출한다; (도 18b) Lmdd-143 및 LmddA-143에 의해 생산된 LLO는 용혈 활성을 보유한다. 양(sheep)의 적혈구를 박테리아 배양 상등액의 연속 희석액(serial dilutions)에서 배양하고 590 nm 흡광도로 용혈 활성을 측정하였다; (도 18c) Lmdd-143 및 LmddA-143을 마크로파지-유사 J774 세포 내에서 성장시켰다. J774 세포를 박테리아와 함께 1 시간 동안 배양한 후 겐타마이신 처리로 세포외 박테리아를 사멸하였다. 표시된 시점에서 얻은 J774 용해물의 연속 희석액을 접종하여 세포내 성장을 측정하였다. 이들 실험에서 Lm 10403S가 대조군으로 사용되었다.
도 19. Lmdd-143 및 LmddA-143를 사용한 마우스의 면역화는 PSA-특이적 면역 반응을 유도한다. C57BL/6 마우스를 1 주일 간격으로 2 회 1x10⁸ CFU의 Lmdd-143, LmddA-143 또는 LmddA-142로 면역화하고, 7 일 후 비장을 수확하였다. 비장세포를 모넨신(monensin)의 존재 중 5 시간 동안 1 μM의 PSA65 -74 펩티드로 자극하였다. CD8, CD3, CD62L 및 세포내 IFN-γ에 대해 세포를 염색하고 FACS Calibur 세포측정기로 분석하였다.
도 20a 및 20b. 도면에서는 종양에서 MDSC 및 Treg의 저하를 보여준다. Lm 백신접종(LmddA-PSA 및 LmddA-E7) 후 MDSC(도 20b) 및 Treg(도 20a)의 개수.
도 21a-21d. 도면에서는 TPSA23 종양(PSA 발현 종양)으로부터의 단핵구 MDSC가 리스테리아 백신접종 후 덜 억제성임을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 PSA-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 21a 및 21b에서 포르볼-미리스테이트-아세테이트(Phorbol-Myristate-Acetate) 및 이오노마이신(PMA/I)은 비-특이적 자극을 나타낸다. 도 21c 및 21d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 21a 및 21c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 21b 및 21d는 풀링된 분열 주기를 보여준다.
도 22a- 22d는리스테리아가 비장의 단핵구 MDSC에 효과가 없으며 이들이 항원-특이적 방식으로만 억제함을 입증하는 억제제 분석 데이터를 보여준다. 도 22a 및 22b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 22c 및 22d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 22a 및 22c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 22b 및 22d는 풀링된 분열 주기를 보여준다.
도 23a-23d는 종양으로부터의 과립구 MDSC가 리스테리아 백신접종 후 T 세포를 억제하는 능력의 감소가 있음을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 PSA-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 23a 및 23b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 23c 및 23d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 23a 및 23c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 23b 및 23d는 풀링된 백분율 분열을 보여준다.
도 24a-24d는 리스테리아가 비장 과립구 MDSC에서 효과가 없으며 이들은 항원-특이적 방식으로만 억제성이 있음을 입증하는 억제 분석 데이터를 보여준다. 도 24a 및 24b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 24c 및 24d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 24a 및 24c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 24b 및 24d는 풀링된 백분율 분열을 보여준다.
도 25a-25d는 종양으로부터의 Treg가 여전히 억제성임을 입증하는 억제 분석 데이터를 보여준다. 이 종양 모델에서, 비-항원 특이적 방식으로 Treg의 억제 능력에 약간의 감소가 있다. 도 25a 및 25b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 25c 및 25d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 Treg의 부재 중 자극된 세포의 분열을 보여준다. 도 25a 및 25c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 25b 및 25d는 풀링된 백분율 분열을 보여준다.
도 26a-26d는 비장의 Treg가 여전히 억제성임을 입증하는 억제 분석 데이터를 보여준다. 도 26a 및 26b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 26c 및 26d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 Treg의 부재 중 자극된 세포의 분열을 보여준다. 도 26a 및 26c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 26b 및 26d는 풀링된 백분율 분열을 보여준다.
도 27a-27d는 통상적인 CD4+ T 세포가 이들이 마우스의 종양 또는 비장에서 발견되는지 여부와 관계없이 세포 분열에 영향이 없음을 입증하는 억제 분석 데이터를 보여준다. 도 27a 및 27b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 27c 및 27d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD3+CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 Treg의 부재 중 자극된 세포의 분열을 보여준다. 도 27c-27d는 풀링된 백분율 분열로부터의 데이터를 보여준다.
도 28a-28d는 4T1 종양(Her2 발현 종양)으로부터의 단핵구 MDSC가 리스테리아 백신접종 후 저하된 억제 능력을 가짐을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 Her2/neu-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 28a 및 28b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 28c 및 28d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 28a 및 28c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 28b 및 28d는 풀링된 백분율 분열을 보여준다.
도 29a-29d는 비장의 단핵구 MDSC에서 리스테리아-특이적 효과가 없음을 입증하는 억제 분석 데이터를 보여준다. 도 29a 및 29b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 29c 및 29d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 29a 및 29c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 29b 및 29d는 풀링된 백분율 분열을 보여준다.
도 30a-30d는 4T1 종양(Her2 발현 종양)으로부터의 과립구 MDSC가 리스테리아 백신접종 후 저하된 억제 능력을 가짐을 입증하는 억제 분석 데이터를 보여준다. 억제에서의 동일한 감소가 Her2/neu-항원 특이적 T 세포 및 비-특이적으로 자극된 T 세포에서도 보였으므로 MDSC의 억제 능력에서의 이 변화는 항원 특이적이 아니다. 도 30a 및 30b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 30c 및 30d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 30a 및 30c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 30b 및 30d는 풀링된 백분율 분열을 보여준다.
도 31a-31d는 비장의 과립구 MDSC 상의 리스테리아-특이적 효과가 없음을 입증하는 억제 분석 데이터를 보여준다. 도 31a 및 31b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 31c 및 31d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. MDSC 없음 그룹은 응답체 T 세포가 비자극된 채로 남아있을 때 응답체 T 세포 분열의 결여를 보여주고 마지막 그룹(PMA/I 또는 펩티드가 첨가됨)은 MDSC의 부재 중 자극된 세포의 분열을 보여준다. 도 31a 및 31c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 31b 및 31d는 풀링된 백분율 분열을 보여준다.
도 32a-32d는 리스테리아 백신접종 후 4T1 종양(Her2 발현 종양)으로부터의 Treg의 억제 능력에서의 저하를 입증하는 억제 분석 데이터를 제시한다. 도 32a 및 32b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 32c 및 32d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. Treg 억제 능력에서의 변화가 Her2/neu-특이적 및 비-특이적 응답체 T 세포에서도 보였으므로 이 감소는 항원 특이적이 아니다. 도 32a 및 32c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 32b 및 32d는 풀링된 백분율 분열을 보여준다.
도 33a-33d는 비장의 Treg 상의 리스테리아-특이적 효과가 없음을 입증하는 억제 분석 데이터를 보여준다. 응답체 T 세포는 이들이 항원 특이적이든지 아니든지 상관없이, 모두 분열이 가능하다. 도 33a 및 33b에서 PMA/I는 비-특이적 자극을 나타낸다. 도 33c 및 33d에서 용어 "펩티드"는 특이적 항원 자극을 나타낸다. 백분율(%) CD8+는 % 주효(응답체) T 세포를 나타낸다. 도 33a 및 33c는 각 그룹에서의 개별 세포 분열 주기를 보여준다. 도 33b 및 33d는 풀링된 백분율 분열을 보여준다.
도 34a-34d는 과립구 MDSC의 억제 능력이 tLLO의 과발현에 기인한 것이며 파트너화 융합 항원과는 무관함을 입증하는 억제 분석 데이터를 보여준다. 좌측 패널(도 34a 및 34c)은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측 패널(도 34b 및 34d)은 풀링된 백분율 분열을 보여준다.
도 35a-35d는 단핵구 MDSC의 억제 능력이 tLLO의 과발현에 기인한 것이며 파트너화 융합 항원과는 무관함을 입증하는 억제 분석 데이터를 보여준다. 좌측 패널(도 35a 및 35c)은 각 그룹에서 개별 세포 분열 주기를 보여준다. 우측 패널(도 35b 및 35d)은 풀링된 백분율 분열을 보여준다.
도 36a-36d는 비장으로부터 정제된 과립구 MDSC가 Lm 백신접종 후 항원-특이적 응답체 T 세포의 분열을 억제하는 이들의 능력을 유지함을 입증하는 억제 분석 데이터를 보여준다(도 34a 및 34b). 그러나, 비-특이적 자극 후, 활성화된 T 세포(PMA/이오노마이신으로)는 여전히 분열할 수 있다(도 36c 및 36d). 좌측-패널은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측-패널은 풀링된 백분율 분열을 보여준다.
도 37a-37d는 비장으로부터 정제된 단핵구 MDSC가 Lm 백신접종 후 항원-특이적 응답체 T 세포의 분열을 억제하는 이들의 능력을 유지함을 입증하는 억제 분석 데이터를 보여준다(도 37a 및 37b). 그러나, 비-특이적 활성화 후(PMA/이오노마이신으로 자극됨), T 세포는 여전히 분열할 수 있다(도 37c 및 37d). 좌측-패널은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측-패널은 풀링된 백분율 분열을 보여준다.
도 38a-38d는 임의의 Lm-처리된 그룹의 종양으로부터 정제된 Treg이, 응답체 세포가 항원 특이적(도 38a 및 38b) 또는 비-특이적으로(도 38c 및 38d) 활성화되는지와 무관하게 응답체 T 세포의 분열을 억제하는 능력이 약간 감소됨을 입증하는 억제 분석 데이터를 보여준다. 좌측-패널은 각 그룹에서의 개별 세포 분열 주기를 보여준다. 우측-패널은 풀링된 백분율 분열을 보여준다.
도 39a-39d는 비장으로부터 정제된 Treg가 항원 특이적(도 39a-39b) 및 비-특이적으로(도 39c 및 39d) 활성화된 응답체 T 세포 둘 다의 분열을 여전히 억제할 수 있음을 입증하는 억제 분석 데이터를 보여준다.
도 40a-40d는 응답체 세포가 항원 특이적(도 40a 및 40b) 또는 비-특이적으로 활성화(도 40c 및 40d)되는지와 무관하게, 종양 Tcon 세포가 T 세포의 분열을 억제할 수 없음을 입증하는 억제 분석 데이터를 보여준다.
도 41a-41d는 응답체 세포가 항원 특이적(도 41a 및 41b) 또는 비-특이적으로 활성화(도 41c 및 41d)되는지와 무관하게, 비장 Tcon 세포가 T 세포의 분열을 억제할 수 없음을 입증하는 억제 분석 데이터를 보여준다.
도 42a-42c. (도 42a) 항-OX40 항체와의 조합 리스테리아-기반 백신(ADXS11-001, 이것은 Lm-LLO-E7임)을 받는 마우스에 대한 처치 계획의 도식으로, 여기에서 종양 성장 및 마우스 생존이 실험 내내 모니터링되었다. (도 42b) 항-OX40 항체와의 조합 리스테리아-기반 백신(ADXS11-001, 이것은 Lm-LLO-E7임)을 받는 마우스에 대한 처치 계획의 도식으로, 여기에서 종양 성장 및 마우스 생존이 실험 내내 모니터링되었다. (도 42a) 및 (도 42b) 둘 다에서 0 일째 마우스에 종양 형성을 개시시키기 위해 7 x 10⁵ TC-1 종양 세포를 주사하였다. 백신접종은 10 일째에 시작하였다. 대조군은 LmddA-LLO 및 리스테리아 균주 XFL7를 포함하였다. (도 42a)는 항-OX40 항체가 실험의 시기에 걸쳐 주 2 회 투여된 것을 보여준다. (도 42b)는 항-GITR 항체가 주 2 회 총 3 용량으로 투여된 것을 보여준다. (도 42c)는 비처치(NT)를 포함하여 12 가지 투여 요법을 확인한다.
도 43a-b. TC-1 종양을 C57BL/6 마우스의 복부에 피하(s.c.) 이식하였다. 종양 용적이 약 0.06 ㎤에 도달했을 때, 2 용량의 Lm 기반 E7 특이적 종양 백신(1x10⁸ 콜로니-형성 단위/마우스)을 7 일 간격으로 복강내(i.p.) 투여하였다. GITR(5 mg/Kg b.wt.; 총 4 용량) 및 OX40(1 mg/Kg b.wt.; 실험 전체에 걸쳐) 항체를 백신과 함께 시작하여 주 2 회 i.p. 주사하였다. 종양 크기를 매주 2 회 측정하였다. 종양 성장(도 43a) 및 생존 백분율(도 43b)을 보여준다. N=5/그룹. 결과는 하나의 대표적 실험으로부터 평균 ± SE로서 보여준다. 실험은 2 회 반복하였다. *p≥0.05, **p≥0.01, ****p≥0.0001.
도 44a- b. TC-1 종양을 C57BL/6 마우스의 복부에 피하(s.c.) 이식하였다. 종양 용적이 약 0.06 ㎤에 도달했을 때, 2 용량의 Lm 기반 E7 특이적 종양 백신(1x10⁸ 콜로니-형성 단위/마우스)을 7 일 간격으로 복강내(i.p.) 투여하였다. OX40(1 mg/Kg b.wt.; 실험 전체에 걸쳐) 항체를 백신과 함께 시작하여 주 2 회 i.p. 주사하였다. 종양 크기를 매주 2 회 측정하였다. 종양 성장(도 44a) 및 생존 백분율(도 44b)을 보여준다. N=5/그룹. 결과는 하나의 대표적 실험으로부터 평균 ± SE로서 보여준다. 실험은 2 회 반복하였다. *p≥0.05, **p≥0.01, ****p≥0.0001.
도 45. 리스테리아-기반 백신 요법과 조합 항-GITR Ab에 대한 백신 투여 조사의 도식.
도 46a 및 46b. 도 46a는 상이한 치료 그룹에 따른 종양-침윤 CD4+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 46b는 상이한 치료 그룹에 따른 종양-침윤 Treg(CD4+FoxP3+) 세포의 개수를 보여주는 막대 그래프를 제시한다.
도 47a 및 47b. 도 47a는 상이한 치료 그룹에 따른 종양-침윤 총 비 Treg(CD4+FoxP3-) 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 47b는 상이한 치료 그룹에 따른 종양-침윤 Treg FoxP3+의 CD4+ 세포의 백분율을 보여주는 막대 그래프를 제시한다.
도 48a 및 48b. 도 48a는 상이한 치료 그룹에 따른 종양-침윤 CD8+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 48b는 상이한 치료 그룹에 따른 종양-침윤 E7-특이적 CD8+ T 세포(항원 특이적)의 개수를 보여주는 막대 그래프를 제시한다.
도 49a 및 49b. 도 49a는 상이한 치료 그룹에 따른, CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다. 도 49b는 상이한 치료 그룹에 따른, E7+CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다.
도 50a, 50b 및 50c. 도 50a는 상이한 치료 그룹에 따른 종양-침윤 골수-유래 억제 세포(MDSC)의 개수를 보여주는 막대 그래프를 제시한다. 도 50b는 상이한 치료 그룹에 따른, 종양-침윤 CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다. 도 50c는 상이한 치료 그룹에 따른, 항원 특이적 종양-침윤 E7-CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다.
도 51. 리스테리아-기반 백신 요법과 조합 항-OX40 Ab에 대한 백신 투여 조사의 도식.
도 52a 및 52b. 도 52a는 상이한 치료 그룹에 따른 종양-침윤 CD4+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 52b는 상이한 치료 그룹에 따른 종양-침윤 Treg(CD4+FoxP3+) 세포의 개수를 보여주는 막대 그래프를 제시한다.
도 53a 및 53b. 도 53a는 상이한 치료 그룹에 따른 종양-침윤 총 비 Treg(CD4+FoxP3-) 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 53b는 상이한 치료 그룹에 따른 종양-침윤 Treg FoxP3+의 CD4+ 세포의 백분율을 보여주는 막대 그래프를 제시한다.
도 54a 및 54b. 도 54a는 상이한 치료 그룹에 따른 종양-침윤 CD8+ T 세포의 개수를 보여주는 막대 그래프를 제시한다. 도 54b는 상이한 치료 그룹에 따른 종양-침윤 E7-특이적 CD8+ T 세포(항원 특이적)의 개수를 보여주는 막대 그래프를 제시한다.
도 55a 및 55b. 도 55a는 상이한 치료 그룹에 따른, CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다. 도 55b는 상이한 치료 그룹에 따른, E7+CD8+/Treg 세포의 비율을 보여주는 막대 그래프를 제시한다.
도 56a, 56b 및 56c. 도 56a는 상이한 치료 그룹에 따른 종양-침윤 골수-유래 억제 세포(MDSC)의 개수를 보여주는 막대 그래프를 제시한다. 도 56b는 상이한 치료 그룹에 따른, 종양-침윤 CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다. 도 56c는 상이한 치료 그룹에 따른, 항원 특이적 종양-침윤 E7-CD8/MDSC의 비율을 보여주는 막대 그래프를 제시한다.
도 57a 및 57b. ADXS31-164의 제작 (도 57a) LmddA 균주에서 염색체 dal -dat 결실의 보완을 위한 구성적 리스테리아 p60 프로모터의 조절 하에서 바실러스 서브틸리스 dal 유전자를 갖는 pAdv164의 플라스미드 맵. 이는 또한 절단된 LLO(1-441)가, 3개 단편인 Her2/neu: EC1(aa 40-170), EC2(aa 359-518) 및 ICI(aa 679-808)의 직접 융합에 의해 제작된 키메라 인간 Her2/neu 유전자로 융합하는 것을 포함한다. (도 57b) tLLO-ChHer2의 발현 및 분비는 항-LLO 항체로 블롯팅된 TCA 침전 세포 배양 상등액의 웨스턴 블롯 분석에 의해 Lm-LLO-ChHer2 (Lm-LLO-138) 및 LmddA-LLO-ChHer2 (ADXS31-164)에서 검출되었다. ~104 KD의 차등 밴드는 tLLO-ChHer2에 상응한다. 내인성 LLO는 58 KD 밴드로서 검출된다. 리스테리아 대조군은 ChHer2 발현이 결여되었다.
도 58a-58c. ADXS31-164의 면역원성 특성(도 58a) 면역화된 마우스로부터의 비장세포에서 Her2/neu 리스테리아-기반 백신에 의해 유발된 세포독성 T 세포 반응은 자극제로서 NT-2 세포 및 표적으로서 3T3/neu 세포를 사용하여 테스트되었다. Lm-대조는 모든 방면에서 동일하지만 비관련 항원(HPV16-E7)을 발현하는 LmddA 백그라운드를 기반으로 하였다. (도 58b) 면역화된 FVB/N 마우스로부터의 비장세포에 의해 세포 배양 배지 내로 분비된 IFN-γ는 미토마이신 C 처리된 NT-2 세포의 시험관내 자극 24시간 후에 ELISA로 측정되었다. (도 58c) 단백질의 상이한 영역으로부터의 펩티드와의 시험관내 인큐베이션에 반응하여 키메라 백신으로 면역화된 HLA-A2 형질전환 마우스로부터의 비장세포에 의한 IFN-γ 분비. 재조합 ChHer2 단백질이 양성 대조군으로서 사용되었고, 비관련 펩티드 또는 펩티드가 없는 그룹이 도면 설명에 열거된 바와 같이 음성 대조군을 구성하였다. IFN-γ 분비는 공동-인큐베이션 72 시간 후에 수확된 세포 배양 상등액을 사용한 ELISA 분석에 의해 검출되었다. 각 데이터 포인트는 삼중 데이터 +/- 표준 오차의 평균이었다. * P 값 < 0.001.
도 59. 리스테리아-ChHer2/neu 백신에 대한 종양 예방 연구 Her2/neu 형질전환 마우스는 각각 재조합 리스테리아-ChHer2 또는 대조 리스테리아 백신으로 6 회 주입되었다. 면역화는 6 주령에 개시되었고 21 주까지 매 3주마다 지속하였다. 종양의 외관을 매주 모니터링하였고 종양이 없는 마우스의 백분율로서 표현하였다. *p < 0.05, 그룹 당 N = 9.
도 60. 비장에서 Treg의 %에 대한 ADXS31-164 면역화의 효과. FVB/N 마우스는 1 x 10⁶ NT-2 세포로 s.c. 접종되었고 1 주 간격으로 각각의 백신으로 3 회 면역화되었다. 비장은 2 차 면역화 후 7 일째에 수확하였다. 면역 세포의 분리 후, 이들을 Treg의 검출을 위해 항 CD3, CD4, CD25 및 FoxP3 항체로 염색하였다. 상이한 치료 그룹에 걸쳐 전체 CD3+ 또는 CD3+CD4+ T 세포의 백분율로서 표시되는, CD25+/FoxP3+ T 세포의 빈도를 보여주는 대표적인 실험으로부터의 Treg의 점-플롯.
도 61a 및 61b. NT-2 종양에서 종양 침윤 Treg의 %에 대한 ADXS31-164 면역화의 효과. FVB/N 마우스는 1 x 10⁶ NT-2 세포로 s.c. 접종되었고 1 주 간격으로 각각의 백신으로 3 회 면역화되었다. 종양은 2차 면역화 후 7 일째에 수확하였다. 면역 세포의 분리 후, 이들을 Treg의 검출을 위해 항 CD3, CD4, CD25 및 FoxP3 항체로 염색하였다. (도 61a ). 대표적 실험으로부터 Treg의 점-플롯. 도 61b. 상이한 처치 그룹에 걸쳐 총 CD3+ 또는 CD3+CD4+ T 세포의 백분율(좌측 패널) 및 종양내 CD8/Treg 비율(우측 패널)로서 표현되는, CD25+/FoxP3+ T 세포의 빈도. 데이터는 2 회의 독립 실험으로부터 수득된 평균 ± SEM으로 나타낸다.
도 62a-62c. ADXS31-164의 백신접종은 뇌에서의 유방암 세포주의 성장을 지연시킬 수 있다. Balb/c 마우스는 ADXS31-164 또는 대조 리스테리아 백신으로 3 회 면역화하였다. EMT6-Luc 세포(5,000)를 마취된 마우스에 두개내 주입하였다. (도 62a) 마우스의 생체외 이미지화는 Xenogen X-100 CCD 카메라를 사용하여 표시된 일자에 실시되었다. (도 62b) 픽셀 밀도는 표면적 cm2 당 초 당 광자 수를 그래프로 나타냈고; 이는 평균 방사 휘도로 표시된다. (도 62c) EMT6-Luc 세포, 4T1-Luc 및 NT-2 세포주에 의한 Her2/neu의 발현은 항-Her2/neu 항체를 사용하여, 웨스턴 블롯으로 검출되었다. 뮤린 대식세포 유사 세포주인 J774.A2 세포를 음성 대조로 사용하였다.
도 63. 미리 설정된 FVB/N Her2/neu, NT-2 종양 마우스 모델에 대한 처치 계획을 보여준다.
예시의 단순성 및 명확성을 위해, 도면에 도시된 요소가 반드시 일정한 비율로 도시된 것은 아님이 인정될 것이다. 예를 들어, 요소의 일부 치수는 명확성을 위해 다른 요소에 비해 과장될 수도 있다. 또한, 적절하다고 인정되는 경우, 참조 번호는 대응하거나 유사한 요소를 나타내기 위해 도면 사이에 반복될 수도 있다.
하기 상세한 설명에서, 많은 특정 세부사항들은 본 발명의 완벽한 이해를 제공하기 위해 진술된다. 그러나, 본 개시는 이들 특정 세부사항 없이도 실시될 수 있음을 당업자자라면 이해할 것이다. 다른 예에서, 주지의 방법, 절차 및 요소는 본 개시를 불명료하게 하지 않도록 상세하게 설명되지 않았다.
일 구현예에서, 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물이 개시되는데, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 조성물은 항체 또는 이의 단편을 추가로 포함한다.
일 구현예에서, 본원에 개시되는 항체 또는 이의 단편은 효능제 항체이다. 다른 구현예에서, 항체 또는 이의 단편은 항-TNF 수용체 항체이다. 다른 구현예에서, 항체 또는 이의 단편은 효능제 항-TNF 수용체 항체이다.
다른 구현예에서는, 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물이 본원에 개시되는데, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 조성물은 효능제 항-TNF 수용체 항체 또는 이의 단편을 추가로 포함한다. 추가의 구현예에서, 리스테리아 균주에 포함되는 핵산 분자는 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서는, 효능제 항체 또는 이의 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물이 본원에 개시되는데, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다.
다른 구현예에서는, 효능제 항-TNF 수용체 항체 또는 이의 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물이 본원에 개시되는데, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다. 추가의 구현예에서, 리스테리아 균주에 포함되는 핵산 분자는 융합 폴리펩티드를 암호화하지 않는다.
일 구현예에서, 효능제 항체 또는 이의 단편은 T-세포 수용체 공동-자극 분자를 포함하는 이종 항원 또는 이의 일부에 결합한다. 그러므로, 다른 구현예에서는, T-세포 수용체 공동-자극 분자에 결합하는 효능제 항체 또는 이의 단편, 및 핵산 분자를 포함하는 재조합 리스테리아균주를 포함하는 면역원성 조성물이 본원에 개시되는데, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다.
또 다른 구현예에서는, T-세포 수용체 공동-자극 분자에 결합하는 효능제 항체 또는 이의 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물이 본원에 개시되는데, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다. 추가의 구현예에서, 리스테리아 균주 에 포함되는 핵산 분자는 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서, 개시되는 효능제 항체 또는 이의 단편은 공동-자극 분자에 결합하는 항원 제시 세포 수용체를 포함하는 항원 또는 이의 일부에 결합한다. 그러므로, 다른 구현예에서는, 공동-자극 분자에 결합하는 항원 제시 세포 수용체에 결합하는 효능제 항체 또는 이의 단편, 및 핵산 분자를 포함하는 리스테리아 균주를 포함하는 면역원성 조성물이 본원에 개시되는데, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다. 다른 구현예에서, 면역원성 조성물은 공동-자극 분자에 결합하는 항원 제시 세포 수용체에 결합하는 효능제 항체 또는 이의 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는데, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다. 추가의 구현예에서, 리스테리아 균주에 포함되는 핵산 분자는 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서, 효능제 항체 또는 이의 단편은 종양 괴사 인자(TNF) 수용체 수퍼패밀리의 구성원을 포함하는 항원 또는 이의 일부에 결합한다. 그러므로, 다른 구현예에서는, TNF 수용체 수퍼패밀리에 결합하는 효능제 항체 또는 이의 단편, 및 핵산 분자를 포함하는 리스테리아 균주를 포함하는 면역원성 조성물이 본원에 개시되는데, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다. 다른 구현예에서, 면역원성 조성물은 TNF 수용체 수퍼패밀리에 결합하는 효능제 항체 또는 이의 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는데, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다. 추가의 구현예에서, 리스테리아 균주 에 포함되는 핵산 분자는 융합 폴리펩티드를 암호화하지 않는다.
일 구현예에서는, 대상에서 증진된 항-종양 T 세포 반응을 유발하는 방법이 개시되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 증진된 항-종양 T 세포 반응을 유발하기 위한 방법의 일부로서 투여되는 재조합 리스테리아 균주는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는 핵산 분자를 포함한다. 추가의 구현예에서, 제1 오픈 리딩 프레임은 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서는, 대상에서 종양-매개 면역억제를 저해하기 위한 방법이 개시되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 대상에서 종양-매개 면역억제를 저해하기 위한 방법의 일부로서 투여되는 재조합 리스테리아 균주는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는 핵산 분자를 포함한다. 추가의 구현예에서, 제1 오픈 리딩 프레임은 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서는, 대상의 비장 및 종양에서 T 주효 세포 대 조절 T 세포(Treg)의 비율을 증가시키는 방법이 개시되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 대상의 비장 및 종양에서 T 주효 세포 대 조절 T 세포(Treg)의 비율을 증가시키는 방법의 일부로서 투여되는 재조합 리스테리아 균주는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는 핵산 분자를 포함한다. 추가의 구현예에서, 제1 오픈 리딩 프레임은 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서는, 대상에서 항원-특이적 T-세포를 증가시키기 위한 방법이 개시되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 대상에서 T 세포를 증가시키기 위한 방법의 일부로서 투여되는 재조합 리스테리아 균주는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는 핵산 분자를 포함한다. 추가의 구현예에서, 제1 오픈 리딩 프레임은 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서는, 종양을 갖거나 암으로 고통받는 대상의 생존 시간을 증가시키기 위한 방법이 개시되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 종양을 갖거나 암으로 고통받는 대상의 생존 시간을 증가시키기 위한 방법의 일부로서 투여되는 재조합 리스테리아 균주는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는 핵산 분자를 포함한다. 추가의 구현예에서, 제1 오픈 리딩 프레임은 융합 폴리펩티드를 암호화하지 않는다.
다른 구현예에서는, 대상에서 종양 또는 암을 치료하는 방법이 개시되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 여기에서 이 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 대상에서 종양 또는 암을 치료하기 위한 방법의 일부로서 투여되는 재조합 리스테리아 균주는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는 핵산 분자를 포함한다. 추가의 구현예에서, 제1 오픈 리딩 프레임은 융합 폴리펩티드를 암호화하지 않는다.
재조합
리스테리아
균주
일 구현예에서, 본 발명의 재조합 리스테리아 균주는 핵산 분자를 포함하는데, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다. 다른 구현예에서, 본 발명의 재조합 리스테리아 균주는 핵산 분자를 포함하는데, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다. 일 구현예에서, 재조합 리스테리아 균주는 약독화된다.
다른 구현예에서, 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열은 이종 항원이나 이의 단편에 융합되지 않는다.
일 구현예에서, 절단된 리스테리올리신 O(LLO) 단백질은 PEST 서열을 포함한다. 다른 구현예에서, 절단된 리스테리올리신 O(LLO) 단백질은 추정 PEST 서열을 포함한다. 일 구현예에서, 절단된 actA 단백질은 PEST-포함 아미노산 서열을 포함한다. 다른 구현예에서, 절단된 actA 단백질은 추정 PEST-포함 아미노산 서열을 포함한다.
일 구현예에서, PEST 아미노산(AA) 서열은 절단된 LLO 서열을 포함한다. 다른 구현예에서, PEST 아미노산 서열은 KENSISSMAPPASPPASPKTPIEKKHADEIDK (서열번호: 1)이다. 다른 구현예에서, 리스테리아 유래의 다른 LM PEST AA 서열에 대한 항원의 융합은 또한 항원의 면역원성을 향상시킨다.
본 발명의 방법 및 조성물의 N-말단 LLO 단백질 단편은, 다른 구현예에서, 서열번호: 3을 포함한다. 다른 구현예에서, 단편은 LLO 신호 펩티드를 포함한다. 다른 구현예에서, 단편은 서열번호: 4를 포함한다. 다른 구현예에서, 단편은 대략 서열번호: 4로 구성된다. 다른 구현예에서, 단편은 필수적으로 서열번호: 4로 구성된다. 다른 구현예에서, 단편은 서열번호: 4에 해당한다. 다른 구현예에서, 단편은 서열번호: 4와 상동성이다. 다른 구현예에서, 단편은 서열번호: 4의 단편과 상동성이다. 시스테인 484을 포함하는 활성화 도메인에 포함되는 아미노 말단으로부터 88 잔기가 절단되어, 실시예 중 일부에서 사용되는 ΔLLO는 416 AA 길이였다(신호 서열 제외). 활성 도메인이 없는, 특히 시스테인 484가 없는, 어떤 ΔLLO라도 본 발명의 방법 및 조성물에 적합하다는 것이 당업자에게 명백할 것이다. 다른 구현예에서, PEST AA 서열, 서열 번호: 1을 포함한, 임의의 ΔLLO에 대한 이종 항원의 융합은 항원의 세포 매개 및 항-종양 면역을 향상시킨다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
당업자는 또한 "PEST-서열 포함 펩티드"라는 용어가 LLO 단백질의 PEST 서열 펩티드 또는 펩티드 단편 또는 그의 ActA 단백질을 포괄할 수 있음을 인정할 것이다. PEST 서열 펩티드는 본 기술분야에 공지되어 있고, 전체가 참조로 본원에 통합된 미국 특허 일련번호 제7,635,479호 및 미국 특허 공보 일련번호 제2014/0186387호에 기술되어 있다.
다른 구현예에서, 원핵 생물의 PEST 서열은 Rechsteiner 및 Roberts(TBS 21:267-271,1996)에 의해 L. 모노사이토제네스에 대해 기술된 것과 같은 방법에 따라 일상적으로 확인될 수 있다. 대안적으로, 다른 원핵 생물의 PEST 아미노산 서열도 이 방법을 기반으로 확인할 수 있다. PEST 아미노산 서열이 예상될 다른 원핵 생물은 다른 리스테리아 종을 포함하지만, 이에 한정되지 않는다. 예를 들어, L. 모노사이토제네스 단백질 ActA는 네 가지 이러한 서열을 포함한다. 이들은 KTEEQPSEVNTGPR(서열번호: 5), KASVTDTSEGDLDSSMQSADESTPQPLK(서열번호: 6), KNEEVNASDFPPPPTDEELR(서열번호: 7), 또는 RGGIPTSEEFSSLNSGDFTDDENSETTEEEIDR(서열번호: 8)이다. 또한 스트렙토코쿠스 종 유래 스트렙톨리신 O는 PEST 서열을 포함한다. 예를 들어, 스트렙토코쿠스 피오게네스 스트렙톨리신 O는 아미노산 35-51에서 PEST 서열 KQNTASTETTTTNEQPK(서열번호: 9)를 포함하며 스트렙토코쿠스 이퀴시밀리스 스트렙톨리신 O는 아미노산 38-54에서 PEST-유사 서열 KQNTANTETTTTNEQPK(서열 번호: 10)을 포함한다. 또한, PEST 서열은 항원 단백질 내에 내장될 수 있다고 여겨진다. 따라서, 본 발명의 목적을 위해, PEST 서열 융합에 관한 경우 "융합"이란, 항원 단백질이 항원 및 항원의 한쪽 말단에 연결되거나 또는 항원 내에 내장된 PEST 아미노산 서열을 둘 다 포함한다는 것을 의미한다. 다른 구현예에서, PEST 서열 또는 PEST 포함 폴리펩티드는 융합 단백질의 일부가 아니고, 폴리펩티드는 이종 항원을 포함하지 않는다.
다른 구현예에서, 구성체 또는 핵산 분자는 PEST 서열-포함 폴리펩티드 또는 PEST-서열 펩티드를 암호화하는 핵산 서열을 갖는 에피솜 또는 플라스미드 벡터로부터 발현된다. 다른 구현예에서, 플라스미드는 항생제 선택의 부재 시 재조합 리스테리아 균주에 안정적으로 유지된다. 다른 구현예에서, 플라스미드는 재조합 리스테리아에 항생제 저항성을 부여하지 않는다. 다른 구현예에서, 단편은 기능적 단편이다. 다른 구현예에서, 단편은 면역원성 단편이다.
본 발명의 백신을 구축하기 위해 이용되는 LLO 단백질은, 다른 구현예에서, 다음 서열을 갖는다:
MKKIMLVFITLILVSLPIAQQTEAKDASAFNKENSISSMAPPASPPASPKTPIEKKHADEIDKYIQGLDYNKNNVLVYHGDAVTNVPPRKGYKDGNEYIVVEKKKKSINQNNADIQVVNAISSLTYPGALVKANSELVENQPDVLPVKRDSLTLSIDLPGMTNQDNKIVVKNATKSNVNNAVNTLVERWNEKYAQAYPNVSAKIDYDDEMAYSESQLIAKFGTAFKAVNNSLNVNFGAISEGKMQEEVISFKQIYYNVNVNEPTRPSRFFGKAVTKEQLQALGVNAENPPAYISSVAYGRQVYLKLSTNSHSTKVKAAFDAAVSGKSVSGDVELTNIIKNSSFKAVIYGGSAKDEVQIIDGNLGDLRDILKKGATFNRETPGVPIAYTTNFLKDNELAVIKNNSEYIETTSKAYTDGKINIDHSGGYVAQFNISWDEVNYDPEGNEIVQHKNWSENNKSKLAHFTSSIYLPGNARNINVYAKECTGLAWEWWRTVIDDRNLPLVKNRNISIWGTTLYPKYSNKVDNPIE (GenBank 수탁번호 P13128; 서열번호: 2; 핵산 서열은 GenBank 수탁번호 X15127로 제시된다). 이 서열에 해당하는 프로단백질의 처음 25 AA는 신호 서열이고 박테리아에 의해 분비될 때 LLO로부터 절단된다. 따라서, 본 구현예에서 전장 활성 LLO 단백질은 504 잔기 길이이다. 다른 구현예에서, 위의 LLO 단편은 본 발명의 백신에 포함되는 LLO 단편의 공급원으로서 사용된다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
다른 구현예에서, 본 발명의 조성물 및 방법에 이용되는 LLO 단백질의 N-말단 단편은 다음 서열을 갖는다:
MKKIMLVFITLILVSLPIAQQTEAKDASAFNKENSISSVAPPASPPASPKTPIEKKHADEIDKYIQGLDYNKNNVLVYHGDAVTNVPPRKGYKDGNEYIVVEKKKKSINQNNADIQVVNAISSLTYPGALVKANSELVENQPDVLPVKRDSLTLSIDLPGMTNQDNKIVVKNATKSNVNNAVNTLVERWNEKYAQAYSNVSAKIDYDDEMAYSESQLIAKFGTAFKAVNNSLNVNFGAISEGKMQEEVISFKQIYYNVNVNEPTRPSRFFGKAVTKEQLQALGVNAENPPAYISSVAYGRQVYLKLSTNSHSTKVKAAFDAAVSGKSVSGDVELTNIIKNSSFKAVIYGGSAKDEVQIIDGNLGDLRDILKKGATFNRETPGVPIAYTTNFLKDNELAVIKNNSEYIETTSKAYTDGKINIDHSGGYVAQFNISWDEVNYD (서열번호: 3).
다른 구현예에서, LLO 단편은 본원에서 이용된 LLO 단백질의 대략 AA 20-442에 해당한다.
다른 구현예에서, LLO 단편은 다음 서열을 갖는다:
MKKIMLVFITLILVSLPIAQQTEAKDASAFNKENSISSVAPPASPPASPKTPIEKKHADEIDKYIQGLDYNKNNVLVYHGDAVTNVPPRKGYKDGNEYIVVEKKKKSINQNNADIQVVNAISSLTYPGALVKANSELVENQPDVLPVKRDSLTLSIDLPGMTNQDNKIVVKNATKSNVNNAVNTLVERWNEKYAQAYSNVSAKIDYDDEMAYSESQLIAKFGTAFKAVNNSLNVNFGAISEGKMQEEVISFKQIYYNVNVNEPTRPSRFFGKAVTKEQLQALGVNAENPPAYISSVAYGRQVYLKLSTNSHSTKVKAAFDAAVSGKSVSGDVELTNIIKNSSFKAVIYGGSAKDEVQIIDGNLGDLRDILKKGATFNRETPGVPIAYTTNFLKDNELAVIKNNSEYIETTSKAYTD (서열번호: 4).
다른 구현예에서, 용어 "말단 LLO 단편", "절단된 LLO", "ΔLLO" 또는 이들의 문법적 동등물은 본원에서 상호교환적으로 사용되고 비-용혈성인 LLO의 단편을 가리킨다. 다른 구현예에서, 이 용어는 추정 PEST 서열을 포함하는 LLO 단편을 의미한다.
다른 구현예에서, LLO 단편은 활성화 도메인의 결실 또는 돌연변이에 의해 비-용혈성이 부여된다. 다른 구현예에서, LLO 단편은 시스테인 484를 포함하는 영역의 결실 또는 돌연변이에 의해 비-용혈성이 부여된다. 다른 구현예에서, LLO는 전체가 참조로 본원에 도입되는 미국 특허 제8,771,702호에 기재된 콜레스테롤 결합 도메인(CBD)의 결실 또는 돌연변이에 의해 비-용혈성이 부여된다.
다른 구현예에서, LLO 단편은 야생형 LLO 단백질의 처음 441 AA를 포함한다. 다른 구현예에서, LLO 단편은 야생형 LLO의 처음 420 AA를 포함한다. 다른 구현예에서, LLO 단편은 야생형 LLO 단백질의 비-용혈성 형태이다.
다른 구현예에서, LLO 단편은 대략 잔기 1-25로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-50으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-75로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-100으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-125로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-150으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-175로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-200으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-225로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-250으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-275로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-300으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-325로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-350으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-375로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-400으로 구성된다. 다른 구현예에서, LLO 단편은 대략 잔기 1-425로 구성된다.
다른 구현예에서, LLO 단편은 위 AA 범위 중 하나에 해당하는 상동성 LLO 단백질의 잔기를 포함한다. 잔기 번호는, 다른 구현예에서, 위에 열거된 잔기 번호와 정확히 일치할 필요는 없으며; 예를 들어 상동성 LLO 단백질이 본원에서 이용되는 LLO 단백질에 대해 상대적인 삽입 또는 결실을 가지는 경우, 그 잔기 번호는 이에 따라 조정될 수 있다. 다른 구현예에서, LLO 단편은 당해 분야에 공지된 임의의 다른 LLO 단편이다.
다른 구현예에서, 상동성 LLO는 본원에 개시된 LLO 서열에 대한 70% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성 LLO는 본원에 개시된 LLO 서열에 대한 72% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 75% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 78% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 80% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 82% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 83% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 85% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 87% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 88% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 90% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 92% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 93% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 95% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 96% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 97% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 98% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 99% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 LLO 서열에 대한 100%의 동일성을 가리킨다.
일 구현예에서, ActA 단백질은 서열번호: 11로 제시되는 서열을 포함한다:
MGLNRFMRAMMVVFITANCITINPDIIFAATDSEDSSLNTDEWEEEKTEEQPSEVNTGPRYETAREVSSRDIKELEKSNKVRNTNKADLIAMLKEKAEKGPNINNNNSEQTENAAINEEASGADRPAIQVERRHPGLPSDSAAEIKKRRKAIASSDSELESLTYPDKPTKVNKKKVAKESVADASESDLDSSMQSADESSPQPLKANQQPFFPKVFKKIKDAGKWVRDKIDENPEVKKAIVDKSAGLIDQLLTKKKSEEVNASDFPPPPTDEELRLALPETPMLLGFNAPATSEPSSFEFPPPPTDEELRLALPETPMLLGFNAPATSEPSSFEFPPPPTEDELEIIRETASSLDSSFTRGDLASLRNAINRHSQNFSDFPPIPTEEELNGRGGRPTSEEFSSLNSGDFTDDENSETTEEEIDRLADLRDRGTGKHSRNAGFLPLNPFASSPVPSLSPKVSKISDRALISDITKKTPFKNPSQPLNVFNKKTTTKTVTKKPTPVKTAPKLAELPATKPQETVLRENKTPFIEKQAETNKQSINMPSLPVIQKEATESDKEEMKPQTEEKMVEESESANNANGKNRSAGIEEGKLIAKSAEDEKAKEEPGNHTTLILAMLAIGVFSLGAFIKIIQLRKNN. 이 서열에 해당하는 프로단백질의 처음 25 AA는 신호 서열이고 박테리아에 의해 분비될 때 ActA 단백질로부터 절단된다. 일 구현예에서, ActA 폴리펩티드 또는 펩티드는 위 서열번호: 11의 AA 1-29인 신호 서열을 포함한다. 다른 구현예에서, ActA 폴리펩티드 또는 펩티드는 위 서열번호: 11의 AA 1-29인 신호 서열을 포함하지 않는다.
일 구현예에서, 절단된 ActA 단백질은 ActA 단백질의 N-말단 단편을 포함한다. 다른 구현예에서, 절단된 ActA 단백질은 ActA 단백질의 N-말단 단편이다. 일 구현예에서, 절단된 ActA 단백질은 서열번호: 12로 제시되는 서열을 포함한다:
MRAMMVVFITANCITINPDIIFAATDSEDSSLNTDEWEEEKTEEQPSEVNTGPRYETAREVSSRDIKELEKSNKVRNTNKADLIAMLKEKAEKGPNINNNNSEQTENAAINEEASGADRPAIQVERRHPGLPSDSAAEIKKRRKAIASSDSELESLTYPDKPTKVNKKKVAKESVADASESDLDSSMQSADESSPQPLKANQQPFFPKVFKKIKDAGKWVRDKIDENPEVKKAIVDKSAGLIDQLLTKKKSEEVNASDFPPPPTDEELRLALPETPMLLGFNAPATSEPSSFEFPPPPTDEELRLALPETPMLLGFNAPATSEPSSFEFPPPPTEDELEIIRETASSLDSSFTRGDLASLRNAINRHSQNFSDFPPIPTEEELNGRGGRP. 다른 구현예에서, ActA 단편은 서열번호: 12로 제시되는 서열을 포함한다.
다른 구현예에서, 절단된 ActA 단백질은 서열번호: 13으로 제시되는 서열을 포함한다: MGLNRFMRAMMVVFITANCITINPDIIFAATDSEDSSLNTDEWEEEKTEEQPSEVNTGPRYETAREVSSRDIKELEKSNKVRNTNKADLIAMLKEKAEKG.
다른 구현예에서, ActA 단편은 본 분야에 알려진 임의의 다른 ActA 단편이다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
다른 구현예에서, 절단된 ActA 단백질을 암호화하는 재조합 뉴클레오티드는 서열번호: 14를 포함한다:
ggaaacagcatcctcgctagattctagttttacaagaggggatttagctagtttgagaaatgctattaatcgccatagtcaaaatttctctgatttcccaccaatcccaacagaagaagagttgaacgggagaggcggtagacca. 다른 구현예에서, 재조합 뉴클레오티드는 서열번호: 14로 제시되는 서열을 갖는다. 다른 구현예에서, 재조합 뉴클레오티드는 ActA 단백질의 단편을 암호화하는 임의의 다른 서열을 포함한다.
다른 구현예에서, "절단된 ActA"또는 "ΔActA"는 PEST 도메인을 포함하는 ActA의 단편을 가리킨다. 다른 구현예에서, 이 용어는 PEST 서열을 포함하는 ActA 단편을 의미한다.
다른 구현예에서, PEST 서열은 원핵 생물로부터 유래되는 다른 PEST AA 서열이다. 다른 구현예에서, PEST 서열은 본 분야에 알려진 임의의 다른 PEST 서열이다.
다른 구현예에서, ActA 단편은 ActA 단백질의 대략 처음 100 AA로 구성된다.
다른 구현예에서, ActA 단편은 대략 잔기 1-25로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-50으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-75로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-100으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-125로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-150으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-175로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-200으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-225로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-250으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-275로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-300으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-325로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-338로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-350으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-375로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-400으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-450으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-500으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-550으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-600으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-639로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-100으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-125로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-150으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-175로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-200으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-225로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-250으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-275로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-300으로 이루어진다. 다른 구현예에서, ActA 단편은 대략 잔기 30-325로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-338로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-350으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-375로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-400으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-450으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-500으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-550으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 1-600으로 구성된다. 다른 구현예에서, ActA 단편은 대략 잔기 30-604로 구성된다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
다른 구현예에서, ActA 단편은 위의 AA 범위 중 하나에 해당하는 상동성 ActA 단백질의 잔기를 포함한다. 잔기 번호는, 다른 구현예에서, 위에 열거된 잔기 번호와 정확히 일치할 필요는 없으며; 예를 들어 상동성 ActA 단백질이 본원에서 이용되는 ActA 단백질에 대해 상대적인 삽입 또는 결실을 가지는 경우, 그 잔기 번호는 이에 따라 조정될 수 있다. 다른 구현예에서, ActA 단편은 당해 분야에 공지된 임의의 다른 ActA 단편이다.
다른 구현예에서, 상동성 ActA는 본원에 개시된 ActA 서열에 대한 70% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성 ActA는 본원에 개시된 ActA 서열에 대한 72% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성 ActA는 본원에 개시된 ActA 서열에 대한 75% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성 ActA는 본원에 개시된 ActA 서열에 대한 78% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 80% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 82% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 83% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 85% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 87% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 88% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 90% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 서열번호: 11 중 하나에 대한 92% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 93% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 95% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 96% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 97% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 98% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 99% 보다 큰 동일성을 가리킨다. 다른 구현예에서, 상동성은 본원에 개시된 ActA 서열에 대한 100%의 동일성을 가리킨다.
용어 "상동성"은, 본원에서 개시되는 임의의 핵산 서열을 참조할 때 대응하는 고유의 핵산 서열의 뉴클레오티드와 동일한 후보 서열 내의 뉴클레오티드의 백분율을 가리킬 수 있음을 당업자는 인정할 것이다.
상동성은, 일 구현예에서, 본 분야에서 널리 기재된 방법에 의해 서열 정렬을 위한 컴퓨터 알고리즘으로 결정된다. 예를 들어, 핵산 서열 상동성의 컴퓨터 알고리즘 분석은 예를 들어, BLAST, DOMAIN, BEAUTY(BLAST 증가 정렬 유틸리티), GENPEPT 및 TREMBL 패키지와 같은 입수 가능한 많은 소프트웨어 패키지의 이용을 포함할 수 있다.
다른 구현예에서, "상동성"은 본원에서 개시되는 서열로부터 선택된 서열에 대한 68% 보다 큰 동일성을 의미한다. 다른 구현예에서, "상동성"은 본원에서 개시되는 서열로부터 선택된 서열에 대한 70% 보다 큰 동일성을 의미한다. 다른 구현예에서, "상동성"은 본원에서 개시되는 서열로부터 선택된 서열에 대한 72% 보다 큰 동일성을 의미한다. 다른 구현예에서, 동일성은 75% 보다 크다. 다른 구현예에서, 동일성은 78% 보다 크다. 다른 구현예에서, 동일성은 80% 보다 크다. 다른 구현예에서, 동일성은 82% 보다 크다. 다른 구현예에서, 동일성은 83% 보다 크다. 다른 구현예에서, 동일성은 85% 보다 크다. 다른 구현예에서, 동일성은 87% 보다 크다. 다른 구현예에서, 동일성은 88% 보다 크다. 다른 구현예에서, 동일성은 90% 보다 크다. 다른 구현예에서, 동일성은 92% 보다 크다. 다른 구현예에서, 동일성은 93% 보다 크다. 다른 구현예에서, 동일성은 95% 보다 크다. 다른 구현예에서, 동일성은 96% 보다 크다. 다른 구현예에서, 동일성은 97% 보다 크다. 다른 구현예에서, 동일성은 98% 보다 크다. 다른 구현예에서, 동일성은 99% 보다 크다. 다른 구현예에서, 동일성은 100%이다.
다른 구현예에서, 상동성은 본 분야에서 널리 기재된 방법인 후보 서열 혼성화의 결정을 통해 결정된다(예를 들어, "Acid Hybridization" Hames, B. D., and Higgins S. J., Eds.(1985); Sambrook 등, 2001, Molecular Cloning, A Laboratory Manual, Cold Spring Harbor Press, N.Y.; 및 Ausubel 등, 1989, Current Protocols in Molecular Biology, Green Publishing Associates and Wiley Interscience, N.Y 참조). 예를 들어, 혼성화 방법은, 적절한 조건 내지 엄격한 조건 하에서 천연 카스파제 펩티드를 암호화하는 DNA의 보체에 대하여 실시될 수 있다. 혼성화 조건은, 예를 들어, 다음을 포함하는 용액 중에 42℃에서 밤새 인큐베이션하는 것이다: 10% 내지 20% 포름아미드, 5 X SSC(150 mM NaCl, 15 mM 시트르산삼나트륨), 50 mM 인산나트륨(pH 7.6), 5 X 덴하르트 용액, 10% 덱스트란황산, 및 20 μg/ml 변성된 시어드 연어 정자 DNA.
일 구현예에서, 본원에서 개시되는 재조합 리스테리아 균주는 항생제 저항성 유전자가 결여되어 있다. 다른 구현예에서, 본원에서 개시되는 재조합 리스테리아 균주는 항생제 저항성 유전자를 암호화하는 핵산을 포함하는 플라스미드를 포함한다.
일 구현예에서, 본원에서 개시되는 재조합 리스테리아는 파고리소좀(phagolysosome)을 탈출할 수 있다.
일 구현예에서, 이종 항원 또는 항원 폴리펩티드는 리스테리아 염색체에서 LLO와 함께 프레임에 통합된다. 다른 구현예에서, 통합된 핵산 분자는 ActA와 함께 프레임에서 actA 유전자 자리로 통합된다. 다른 구현예에서, ActA를 암호화하는 염색체 핵산은 항원을 암호화하는 핵산 분자로 교체된다.
일 구현예에서, 이종 항원은 종양-관련 항원이다. 다른 구현예에서, 종양-관련 항원은 자연 발생 종양-관련 항원이다. 다른 구현예에서, 종양-관련 항원은 합성 종양-관련 항원이다. 또 다른 구현예에서, 종양-관련 항원은 키메라 종양-관련 항원이다.
일 구현예에서, 본원에서 개시되는 재조합 리스테리아는 핵산 분자를 포함한다. 다른 구현예에서, 본원에서 개시되는 핵산 분자는 이종 항원 또는 이의 단편을 포함하는 재조합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함한다. 다른 구현예에서, 재조합 폴리펩티드는 이종 항원에 융합된 절단된 LLO 단백질, 절단된 ActA 단백질 또는 PEST 서열 펩티드를 추가로 포함한다. 다른 구현예에서, 절단된 LLO 단백질은 N-말단 LLO 또는 이의 단편이다. 다른 구현예에서, 절단된 ActA 단백질은 N-말단 ActA 단백질 또는 이의 단편이다.
다른 구현예에서, 본원에 개시되는 핵산 분자는 절단된 LLO 단백질, 절단된 ActA 단백질 또는 PEST 서열 펩티드를 포함하는 재조합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 절단된 LLO 단백질, 절단된 ActA 단백질 또는 PEST 서열 펩티드는 이종 항원에 융합되지 않는다. 다른 구현예에서, 제1 오픈 리딩 프레임은 N-말단 LLO 또는 이의 단편을 포함하는 절단된 LLO 단백질을 암호화한다. 다른 구현예에서, 제1 오픈 리딩 프레임은 N-말단 ActA 단백질 또는 이의 단편을 포함하는 절단된 ActA 단백질을 암호화한다. 다른 구현예에서, 제1 오픈 리딩 프레임은 필수적으로 N-말단 LLO 또는 이의 단편으로 구성되는 절단된 LLO 단백질을 암호화한다. 다른 구현예에서, 제1 오픈 리딩 프레임은 필수적으로 N-말단 ActA 단백질 또는 이의 단편으로 구성되는 절단된 ActA 단백질을 암호화한다. 다른 구현예에서, 제1 오픈 리딩 프레임은 N-말단 LLO 또는 이의 단편으로 구성되는 절단된 LLO 단백질을 암호화한다. 다른 구현예에서, 제1 오픈 리딩 프레임은 N-말단 ActA 단백질 또는 이의 단편으로 구성되는 절단된 ActA 단백질을 암호화한다.
일 구현예에서, 용어 "항원", "항원 단편", "항원 부분", "이종 단백질", "이종 항원", "이종 단백질 항원", "단백질 항원", "항원", "항원성 폴리펩티드", 또는 이들의 문법적 동등물은 본원에서 상호교환적으로 사용되고, 대상의 세포에 존재하는 MHC 클래스 I 및/또는 클래스 II 분자에서 가공되고 제시되어 숙주에 존재시, 또는 다른 구현예에서 숙주에 의해 검출시, 면역 반응의 개시를 유도하는, 본원에서 기술되는 폴리펩티드, 펩티드 또는 재조합 펩티드를 가리키는 것을 의미한다. 일 구현예에서, 항원은 숙주에 대하여 이물일 수 있다. 다른 구현예에서, 항원은 숙주에 존재할 수 있지만 면역학적 내성 때문에 숙주가 이에 대하여 면역 반응을 유발하지 않는다.
일 구현예에서, 본원에 개시되는 핵산 분자는 대사 효소를 암호화하는 제2 오픈 리딩 프레임을 추가로 포함한다. 다른 구현예에서, 대사 효소는 재조합 리스 테리아 균주의 염색체에 결여되어 있는 내인성 유전자를 보완한다. 다른 구현예에서, 제2 오픈 리딩 프레임에 의해 암호화되는 대사 효소는 알라닌 라세미화 효소(dal)이다. 다른 구현예에서, 제2 오픈 리딩 프레임에 의해 암호화되는 대사 효소는 D-아미노산 전이효소(dat)이다. 다른 구현예에서, 본원에 개시되는 리스테리아 균주는 내인성 dal /dat 유전자에서 돌연변이를 포함한다. 다른 구현예에서, 리스테리아는 dal /dat 유전자가 결여된다. 다른 구현예에서, dal /dat 유전자는 리스테리아 염색체에서 결실된다. 다른 구현예에서, dal /dat 유전자는 리스테리아 염색체에서 절단된다.
다른 구현예에서, 개시된 방법 및 조성물의 핵산 분자는 프로모터/조절 서열에 작동 가능하게 연결된다. 다른 구현예에서, 개시된 방법 및 조성물의 제1 오픈 리딩 프레임은 프로모터/조절 서열에 작동 가능하게 연결된다. 다른 구현예에서, 개시된 방법 및 조성물의 제2 오픈 리딩 프레임은 프로모터/조절 서열에 작동 가능하게 연결된다. 다른 구현예에서, 각각의 오픈 리딩 프레임은 프로모터/조절 서열에 작동 가능하게 연결된다.
"대사 효소"는, 다른 구현예에서, 숙주 박테리아에 의해 요구되는 영양소의 합성에 관련된 효소를 의미한다. 다른 구현예에서, 이 용어는 숙주 박테리아에 의해 요구되는 영양소의 합성에 요구되는 효소를 가리킨다. 다른 구현예에서, 이 용어는 숙주 박테리아에 의해 이용되는 영양소의 합성에 관련된 효소를 가리킨다. 다른 구현예에서, 이 용어는 숙주 박테리아의 지속되는 성장을 위해 요구되는 영양소의 합성에 관련된 효소를 가리킨다. 다른 구현예에서, 이 효소는 영양소의 합성을 위해 요구된다.
다른 구현예에서, 재조합 리스테리아는 약독화된 영양요구성 균주이다. 다른 구현예에서, 재조합 리스테리아는 그 전체가 참조로 본원에 통합된 미국특허 제8,114,414호에 기재된 Lm-LLO-E7 균주이다.
일 구현예에서, 약독화 균주는 Lm dal(-)dat(-) (Lmdd)이다. 다른 구현예에서, 약독화 균주는 Lm dal(-)dat(-)ΔactA (LmddA)이다. LmddA는, 독성 유전자 actA의 결실로 인해 약독화되고, dal 유전자의 보완에 의한 생체내 및 시험관내 절단된 LLO 발현 또는 원하는 이종 항원을 위한 플라스미드를 보유하는 리스테리아 균주를 기반으로 한다.
다른 구현예에서, 약독화 균주는 LmΔactA이다. 다른 구현예에서, 약독화 균주는 LmΔPrfA이다. 다른 구현예에서, 약독화 균주는 LmΔPlcB이다. 다른 구현예에서, 약독화 균주는 LmΔPlcA이다. 다른 구현예에서, 이 균주는 위에 언급된 임의의 균주의 이중 돌연변이체 또는 삼중 돌연변이체이다. 다른 구현예에서, 이 균주는 리스테리아-기반 백신의 고유한 속성인 강력한 보강제(adjuvant) 효과를 발휘한다. 다른 구현예에서, 이 균주는 EGD 리스테리아 골격으로부터 구축된다. 다른 구현예에서, 본 발명에 사용되는 균주는 비-용혈 LLO를 발현하는 리스테리아 균주이다.
다른 구현예에서, 리스테리아 균주는 영양요구성 돌연변이체이다. 다른 구현예에서, 리스테리아 균주는 비타민 합성 유전자를 암호화하는 유전자가 결핍되어 있다. 다른 구현예에서, 리스테리아 균주는 판토텐산 합성 효소를 암호화하는 유전자가 결핍되어 있다.
일 구현예에서, D-알라닌이 결핍된 리스테리아의 AA 균주의 생성은, 예를 들어, 당해 기술 분야의 당업자에게 잘 알려진 많은 방법으로 달성될 수 있는데, 결실 돌연변이생성, 삽입 돌연변이생성, 그리고 프레임 이동 돌연변이의 생성을 야기하는 돌연변이생성, 단백질의 조기 종결을 야기하는 돌연변이, 또는 유전자 발현에 영향을 미치는 조절 서열의 돌연변이를 포함한다. 다른 구현예에서, 돌연변이는 재조합 DNA 기법을 사용하거나 돌연변이유발 화학 물질 또는 방사선 다음에 돌연변이체의 선택을 사용하는 기존의 돌연변이 기법을 사용하여 달성될 수 있다. 다른 구현예에서는, 결실 돌연변이체가 바람직한데, 영양요구성 표현형의 낮은 복귀 가능성을 동반하기 때문이다. 다른 구현예에서, 본원에서 제시되는 프로토콜에 따라 생성되는 D-알라닌의 돌연변이체는 간단한 실험실 배양 분석에서 D-알라닌 부재시에 성장하는 능력에 대해 시험될 수 있다. 다른 구현예에서는, 이 화합물의 부재시에 성장할 수 없는 돌연변이체가 추가 연구를 위해 선택된다.
다른 구현예에서, 전술한 D-알라닌 관련 유전자에 더하여, 본원에 개시된 대사 효소의 합성에 관여하는 다른 유전자들이 리스테리아의 돌연변이유발에 대한 표적으로 사용될 수 있다.
다른 구현예에서, 대사 효소는 재조합 박테리아 균주의 염색체의 나머지가 결여된 내인성 대사 유전자를 보완한다. 일 구현예에서, 내인성 대사 유전자는 염색체에서 돌연변이된다. 다른 구현예에서, 내인성 대사 유전자는 염색체에서 결실된다. 다른 구현예에서, 대사 효소는 아미노산 대사 효소이다. 다른 구현예에서, 대사 효소는 재조합 리스테리아 균주에서 세포벽 합성에 사용되는 아미노산의 형성을 촉매한다. 다른 구현예에서, 대사 효소는 알라닌 라세미화 효소이다. 다른 구현예에서, 대사 효소는 D-아미노산 전이 효소이다.
일 구현예에서, 영양요구성 리스테리아 균주는 영양요구성 리스테리아 균주의 영양요구성을 보완하는 대사 효소를 포함하는 에피솜 발현 벡터를 포함한다. 다른 구현예에서, 구성체는 에피솜 방식으로 리스테리아 균주에 포함되어 있다. 다른 구현예에서, 외래 항원은 재조합 리스테리아 균주에 들어있는 벡터로부터 발현된다. 다른 구현예에서, 에피솜 발현 벡터는 항생제 저항성 마커가 결여되어 있다. 일 구현예에서, 본원에 개시되는 방법 및 조성물의 항원은 PEST 서열을 포함하는 폴리펩티드에 융합된다.
다른 구현예에서, 리스테리아 균주는 아미노산(AA) 대사 효소가 결핍되어 있다. 다른 구현예에서, 리스테리아 균주는 D-글루탐산 합성효소 유전자가 결핍되어 있다. 다른 구현예에서, 리스테리아 균주는 dal 유전자가 결핍되어 있다. 다른 구현예에서, 리스테리아 균주는 dga 유전자가 결핍되어 있다. 다른 구현예에서, 리스테리아 균주는 디아미노피멜산(diaminopimelic acid)의 합성에 관여하는 유전자 CysK가 결핍되어 있다. 다른 구현예에서, 유전자는 비타민-B12 비의존성 메티오닌 합성효소이다. 다른 구현예에서, 유전자는 trpA이다. 다른 구현예에서, 유전자는 trpB이다. 다른 구현예에서, 유전자는 trpE이다. 다른 구현예에서, 유전자는 asnB이다. 다른 구현예에서, 유전자는 gltD이다. 다른 구현예에서, 유전자는 gltB이다. 다른 구현예에서, 유전자는 leuA이다. 다른 구현예에서, 유전자는 argG이다. 다른 구현예에서, 유전자는 thrC이다. 다른 구현예에서, 리스테리아 균주는 상술한 유전자 중 하나 이상이 결핍되어 있다.
다른 구현예에서, 리스테리아 균주는 합성효소 유전자가 결핍되어 있다. 다른 구현예에서, 유전자는 AA 합성 유전자이다. 다른 구현예에서, 유전자는 folP이다. 다른 구현예에서, 유전자는 디하이드로우리딘 합성효소 패밀리 단백질이다. 다른 구현예에서, 유전자는 ispD이다. 다른 구현예에서, 유전자는 ispF이다. 다른 구현예에서, 유전자는 포스포에놀피루베이트 합성효소이다. 다른 구현예에서, 유전자는 hisF이다. 다른 구현예에서, 유전자는 hisH이다. 다른 구현예에서, 유전자는 fliI이다. 다른 구현예에서, 유전자는 리보솜 대형 서브유닛 슈도우리딘 합성효소이다. 다른 구현예에서, 유전자는 ispD이다. 다른 구현예에서, 유전자는 2작용 GMP 합성효소/글루타민 아미도전이효소 단백질이다. 다른 구현예에서, 유전자는 cobS이다. 다른 구현예에서, 유전자는 cobB이다. 다른 구현예에서, 유전자는 cbiD이다. 다른 구현예에서, 유전자는 우로포르피린-III C-메틸전이효소/우로포르피리노겐-III 합성효소이다. 다른 구현예에서, 유전자는 cobQ이다. 다른 구현예에서, 유전자는 uppS이다. 다른 구현예에서, 유전자는 truB이다. 다른 구현예에서, 유전자는 dxs이다. 다른 구현예에서, 유전자는 mvaS이다. 다른 구현예에서, 유전자는 dapA이다. 다른 구현예에서, 유전자는 ispG이다. 다른 구현예에서, 유전자는 folC이다. 다른 구현예에서, 유전자는 시트레이트 합성효소이다. 다른 구현예에서, 유전자는 argJ이다. 다른 구현예에서, 유전자는 3-데옥시-7-포스포헵툴로네이트 합성효소이다. 다른 구현예에서, 유전자는 인돌-3-글리세롤-포스페이트 합성효소이다. 다른 구현예에서, 유전자는 안트라닐레이트 합성효소/글루타민 아미도전이효소 구성 요소이다. 다른 구현예에서, 유전자는 menB이다. 다른 구현예에서, 유전자는 메나퀴논-특이적 이소코리스미네이트 합성효소이다. 다른 구현예에서, 유전자는 포스포리보실포르밀글리신아미딘 합성효소 I 또는 II이다. 다른 구현예에서, 유전자는 포스포리보실아미노이미다졸-숙시노카르복사미드 합성효소이다. 다른 구현예에서, 유전자는 carB이다. 다른 구현예에서, 유전자는 carA이다. 다른 구현예에서, 유전자는 thyA이다. 다른 구현예에서, 유전자는 mgsA이다. 다른 구현예에서, 유전자는 aroB이다. 다른 구현예에서, 유전자는 hepB이다. 다른 구현예에서, 유전자는 rluB이다. 다른 구현예에서, 유전자는 ilvB이다. 다른 구현예에서, 유전자는 ilvN이다. 다른 구현예에서, 유전자는 alsS이다. 다른 구현예에서, 유전자는 fabF이다. 다른 구현예에서, 유전자는 fabH이다. 다른 구현예에서, 유전자는 슈도우리딘 합성효소이다. 다른 구현예에서, 유전자는 pyrG이다. 다른 구현예에서, 유전자는 truA이다. 다른 구현예에서, 유전자는 pabB이다. 다른 구현예에서, 유전자는 atp 합성효소 유전자이다(예를 들어, atpC, atpD-2, aptG, atpA-2 등).
다른 구현예에서, 유전자는 phoP이다. 다른 구현예에서, 유전자는 aroA이다. 다른 구현예에서, 유전자는 aroC이다. 다른 구현예에서, 유전자는 aroD이다. 다른 구현예에서, 유전자는 plcB이다.
다른 구현예에서, 리스테리아 균주는 펩티드 수송체가 결여된다. 다른 구현예에서, 유전자는 ABC 수송체/ATP-결합/투과효소 단백질이다. 다른 구현예에서, 유전자는 올리고펩티드 ABC 수송체/올리고펩티드-결합 단백질이다. 다른 구현예에서, 유전자는 올리고펩티드 ABC 수송체/투과효소 단백질이다. 다른 구현예에서, 유전자는 아연 ABC 수송체/아연-결합 단백질이다. 다른 구현예에서, 유전자는 당 ABC 수송체이다. 다른 구현예에서, 유전자는 인산염 수송체이다. 다른 구현예에서, 유전자는 ZIP 아연 수송체이다. 다른 구현예에서, 유전자는 EmrB/QacA 패밀리의 약물 저항성 수송체이다. 다른 구현예에서, 유전자는 황산염 수송체이다. 다른 구현예에서, 유전자는 양성자-의존성 올리고펩티드 수송체이다. 다른 구현예에서, 유전자는 마그네슘 수송체이다. 다른 구현예에서, 유전자는 포름산염/아질산염 수송체이다. 다른 구현예에서, 유전자는 스퍼미딘/퓨트레신 ABC 수송체이다. 다른 구현예에서, 유전자는 Na/Pi-공동수송체이다. 다른 구현예에서, 유전자는 당 인산염 수송체이다. 다른 구현예에서, 유전자는 글루타민 ABC 수송체이다. 다른 구현예에서, 유전자는 주 촉진자(major facilitator) 패밀리 수송체이다. 다른 구현예에서, 유전자는 글리신 베타인/L-프롤린 ABC 수송체이다. 다른 구현예에서, 유전자는 몰리브덴 ABC 수송체이다. 다른 구현예에서, 유전자는 테코익산 ABC 수송체이다. 다른 구현예에서, 유전자는 코발트 ABC 수송체이다. 다른 구현예에서, 유전자는 암모늄 수송체이다. 다른 구현예에서, 유전자는 아미노산 ABC 수송체이다. 다른 구현예에서, 유전자는 세포 분열 ABC 수송체이다. 다른 구현예에서, 유전자는 망간 ABC 수송체이다. 다른 구현예에서, 유전자는 철 화합물 ABC 수송체이다. 다른 구현예에서, 유전자는 말토오스/말토덱스트린 ABC 수송체이다. 다른 구현예에서, 유전자는 Bcr/CflA 패밀리의 약물 저항성 수송체이다. 다른 구현예에서, 유전자는 위 단백질 중 하나의 서브유닛이다.
일 구현예에서는, 재조합 리스테리아에 이르도록 리스테리아를 형질전환시키는 데 사용되는 핵산 분자가 본원에서 개시된다. 다른 구현예에서, 리스테리아를 형질전환시키는 데 사용되는 본원에서 개시되는 핵산은 독성 유전자가 결여된다. 다른 구현예에서, 핵산 분자는 리스테리아 게놈 내에 통합되고 비-기용성 독성 유전자를 운반한다. 다른 구현예에서, 독성 유전자는 재조합 리스테리아에서 돌연변이된다. 또 다른 구현예에서, 핵산 분자는 리스테리아 게놈에 존재하는 내인성 유전자를 비활성화시키는 데 사용된다. 또 다른 구현예에서, 독성 유전자는 actA 유전자, inlA 유전자, 및 inlB 유전자, inlC 유전자, inlJ 유전자, plbC 유전자, bsh 유전자, 또는 prfA 유전자이다. 독성 유전자는 재조합 리스테리아의 독성과 관련되는 것으로 해당 분야에 알려진 임의의 유전자일 수 있다는 것이 당업자에 의해 이해될 것이다.
일 구현예에서, 리스테리아 균주는 하나 이상의 내인성 유전자에서 돌연변이를 포함한다. 다른 구현예에서 리스테리아 균주는 dal 돌연변이체, dat 돌연변이체, inlA 돌연변이체, inlB 돌연변이체, inlC 돌연변이체, inlJ 돌연변이체, prfA 돌연변이체, actA 돌연변이체, dal /dat 돌연변이체, prfA 돌연변이체, plcB 결실 돌연변이체, 또는 plcA 및 plcB 또는 actA 및 inlB 또는 dal 및 dat 둘 다에서의 이중 돌연변이체, 또는 dal /dat 및 actA에서의 삼중 돌연변이체이다. 다른 구현예에서, 본원에서 개시되는 리스테리아는 이들 유전자의 어느 하나 또는 이들 유전자의 조합에서 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 리스테리아는 이들 유전자 중 각각 하나가 결여되어 있다. 다른 구현예에서, 본원에 개시되는 리스테리아는 actA, prfA, 및 dal/dat 유전자를 포함하여, 본원에서 개시되는 임의의 유전자 중 적어도 하나 및 10 개까지 결여되어 있다.
다른 구현예에서, dal 및 dat 돌연변이를 포함하는 리스테리아 균주는 리스테리아 균주 내에서 플라스미드에 존재하는 핵산 서열에서의 제2 오픈 리딩 프레임에 의해 암호화되는 대사 효소에 의해 보완된다. 다른 구현예에서, prfA 돌연변이를 포함하는 리스테리아 균주는 D133V 아미노산 돌연변이를 포함하는 돌연변이체 PrfA 단백질에 의해 보완된다. 다른 구현예에서, 돌연변이체 D133V PrfA 단백질은 리스테리아 균주 내에서 플라스미드에 존재하는 핵산 서열에서의 제2 오픈 리딩 프레임에 의해 암호화된다.
일 구현예에서, 생 약독화 리스테리아는 재조합 리스테리아이다. 다른 구현예에서, 재조합 리스테리아는 게놈 인터날린 C(inlC) 유전자에서 돌연변이를 포함한다. 다른 구현예에서, 재조합 리스테리아는 게놈 actA 유전자 및 게놈 인터날린 C 유전자에서 돌연변이를 포함한다. 일 구현예에서, 인접하는 세포로의 리스테리아의 전위(translocation)는 actA 유전자 및/또는 inlC 유전자의 결실에 의해 억제되는데, 이들은 이 과정에 연관되어, 이에 의해 백신 골격으로서 증가된 면역원성 및 유용성을 가지고 예기치 않게 높은 수준의 약독화를 야기한다.
일 구현예에서, 대사 유전자, 독성 유전자 등은 리스테리아 균주의 염색체에서 결여되어 있다. 다른 구현예에서, 대사 유전자, 독성 유전자 등은 리스테리아 균주의 염색체 및 임의의 에피솜 유전적 요소에서 결여되어 있다. 다른 구현예에서, 대사 유전자, 독성 유전자 등은 독성 균주의 게놈에서 결여되어 있다. 일 구현예에서, 독성 유전자는 염색체에서 돌연변이된다. 다른 구현예에서, 독성 유전자는 염색체로부터 결실된다.
일 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 약독화된다. 다른 구현예에서, 재조합 리스테리아는 actA 독성 유전자가 결여된다. 다른 구현예에서, 재조합 리스테리아는 prfA 독성 유전자가 결여된다. 다른 구현예에서, 재조합 리스테리아는 inlB 유전자가 결여된다. 다른 구현예에서, 재조합 리스테리아는 actA 및 inlB 유전자 둘 다 결여된다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 actA 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 inlB 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 inlC 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 actA 및 inlB 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 actA 및 inlC 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 actA, inlB, 및 inlC 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 actA, inlB, 및 inlC 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 내인성 actA, inlB, 및 inlC 유전자의 불활성화 돌연변이를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 다음 유전자 중 임의의 단일 유전자 또는 조합에서의 불활성화 돌연변이를 포함한다: actA, dal, dat, inlB, inlC, prfA, plcA, plcB.
용어 "돌연변이" 및 그 문법적 등가물은, 서열(핵산 또는 아미노산 서열)에 대한 변형 또는 돌연변이의 임의의 유형을 포함하며, 결실, 절단(truncation), 불활성화, 파괴(disruption), 교체, 또는 전좌를 포함한다는 것이 당업자에 의해 인정될 것이다. 이들 유형의 돌연변이는 본 기술분야에 잘 공지되어 있다.
일 구현예에서, 본원에 개시되는 보완 유전자 또는 대사 효소를 암호화하는 플라스미드를 포함하는, 영양요구성 리스테리아와 같은 영양요구성 박테리아를 선별하기 위해, 형질전환된 영양요구성 박테리아는, 아미노산 대사 유전자 또는 보완 유전자의 발현을 위해 선별될 배지에서 성장된다. 다른 구현예에서, D-글루탐산 합성에 대한 영양요구성 박테리아는 D-글루탐산 합성을 위한 유전자를 포함하는 플라스미드로 형질전환되고, 영양요구성 박테리아는 D-글루탐산의 부재 중 성장할 것인 반면, 플라스미드로 형질전환되지 않았거나, 또는 D-글루탐산 합성을 위한 단백질을 암호화하는 플라스미드를 발현하지 않는 영양요구성 박테리아는 성장하지 않을 것이다. 다른 구현예에서, D-알라닌 합성에 대한 영양 요구성 박테리아는, 플라스미드가 D-알라닌 합성을 위한 아미노산 대사 효소를 암호화하는 단리된 핵산을 포함할 경우 본 발명의 플라스미드로 형질전환되고 발현할 때, D-알라닌의 부재 중 성장할 것이다. 필요한 성장 인자, 보충제, 아미노산, 비타민, 항생제 등을 포함하거나 결여된 적절한 배지를 제조하는 이러한 방법은, 본 기술분야에서 주지되어 있고 상업적으로 입수 가능하다(Becton-Dickinson, 뉴저지 프랭클린 레이크스).
다른 구현예에서, 보완 플라스미드를 포함하는 영양요구성 박테리아가 적절한 배지에 선택되었다면, 박테리아는 선택 압력의 존재 중 증식된다. 이러한 증식은 영양요구성 인자가 없는 배지에서 박테리아를 성장시키는 것을 포함한다. 영양요구성 박테리아에서 아미노산 대사 효소를 발현하는 플라스미드의 존재는 이 플라스미드가 박테리아와 함께 복제될 것이고, 따라서 플라스미드를 보유하는 박테리아에 대한 지속적 선별을 보장한다. 당업자라면, 본 개시와 본원에서의 방법이 구비될 때, 플라스미드를 포함하는 영양요구성 박테리아가 성장하는 배지의 부피를 조정함으로써 리스테리아 균주의 생산 규모를 용이하게 확대할 수 있을 것이다.
당업자라면 다른 구현예에서, 다른 영양요구성 균주들과 보완 시스템이 본 개시와 함께 사용하도록 채택되는 것을 인정할 것이다.
일 구현예에서, N-말단 LLO 단백질 단편 및 이종 항원은 서로 직접 융합된다. 다른 구현예에서, N-말단 LLO 단백질 단편 및 이종 항원을 암호화하는 유전자는 서로 직접 융합된다. 다른 구현예에서, N-말단 LLO 단백질 단편 및 이종 항원은 링커 펩티드를 통해 작동 가능하게 부착된다. 다른 구현예에서, N-말단 LLO 단백질 단편 및 이종 항원은 이종 펩티드를 통해 부착된다. 다른 구현예에서, N-말단 LLO 단백질 단편은 이종 항원에 대하여 N-말단이다. 다른 구현예에서, N-말단 LLO 단백질 단편은 단독으로, 즉 비융합된 형태로, 발현 및 사용된다. 다른 구현예에서, N-말단 LLO 단백질 단편은 융합 단백질의 N-최말단부이다. 다른 구현예에서, 절단된 LLO는 N-말단 LLO에 이르도록 C-말단에서 절단된다. 다른 구현예에서, 절단된 LLO는 비-용혈성 LLO이다.
본원에 개시된 바와 같이, 과립구 MDSC의 억제 능력에서 예상치 못한 변화가 있었으며, 이것은 파트너링하는 융합 항원에 비의존적인 tLLO의 과발현에 기인한다(실시예 19 참조).
일 구현예에서, N-말단 ActA 단백질 단편 및 이종 항원은 서로 직접 융합된다. 다른 구현예에서, N-말단 ActA 단백질 단편 및 이종 항원을 암호화하는 유전자는 서로 직접 융합된다. 다른 구현예에서, N-말단 ActA 단백질 단편 및 이종 항원은 링커 펩티드를 통해 작동 가능하게 부착된다. 다른 구현예에서, N-말단 ActA 단백질 단편 및 이종 항원은 이종 펩티드를 통해 부착된다. 다른 구현예에서, N-말단 ActA 단백질 단편은 이종 항원에 대하여 N-말단이다. 다른 구현예에서, N-말단 ActA 단백질 단편은 단독으로, 즉 비융합된 형태로, 발현 및 사용된다. 다른 구현예에서, N-말단 ActA 단백질 단편은 융합 단백질의 N-최말단부이다. 다른 구현예에서, 절단된 ActA는 N-말단 ActA에 이르도록 C-말단에서 절단된다.
일 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 재조합 폴리펩티드를 발현한다. 다른 구현예에서, 재조합 리스테리아 균주는 재조합 폴리펩타이드를 암호화하는 플라스미드를 포함한다. 다른 구현예에서, 본원에 개시되는 재조합 핵산은 본원에 개시되는 재조합 리스테리아 균주 내 플라스미드 내에 있다. 다른 구현예에서, 플라스미드는 재조합 리스테리아 균주의 염색체에 통합하지 않는 에피솜 플라스미드이다. 다른 구현예에서, 플라스미드는 리스테리아 균주의 염색체에 통합하는 통합 플라스미드(integrative plasmid)이다. 다른 구현예에서, 플라스미드는 멀티카피 플라스미드이다.
일 구현예에서, 본원에 개시된 조성물 및 방법의 재조합 리스테리아 균주는 종양 세포에 의해 발현되는 이종 항원성 폴리펩티드를 발현한다. 일 구현예에서, 종양-관련 항원은 전립선 특이적 항원(PSA)이다. 다른 구현예에서, 종양-관련 항원은 인간 유두종 바이러스(HPV) 항원이다. 또 다른 구현예에서, 종양-관련 항원은 미국 특허 공개번호 US2011/014279에 기술된 Her2/neu 키메라 항원으로, 이러한 특허 문헌의 전문은 본원에 참고로 도입된다. 또 다른 구현예에서, 종양-관련 항원은 혈관형성 항원이다.
일 구현예에서, 본원에서 개시된 조성물 및 방법의 재조합 리스테리아 균주는, 일 구현예에서 전립선 종양에 의해 고도로 발현되는 전립선암용 마커인 전립선 특이적 항원(PSA)을 암호화하는 제1 또는 제2 핵산 분자를 포함한다. 일 구현예에서, PSA는 전립선 상피세포가 분비하는 칼리크레인 세린 단백분해효소(kallikrein serine protease: KLK3)로서, 이는 일 구현예에서, 전립선암용 마커로서 널리 사용된다. 본원에서 사용되는 용어 PSA 및 KLK3는 동일한 의미 및 성질을 갖고 상호교환 가능하다.
일 구현예에서, 본원에서 개시된 재조합 리스테리아 균주는 종양 관련 항원을 암호화하는 핵산 분자를 포함한다. 일 구현예에서, 종양 관련 항원은 KLK3 폴리펩티드 또는 이의 단편을 포함한다. 일 구현예에서, 본원에서 개시된 재조합 리스테리아 균주는 KLK3 단백질을 암호화하는 핵산 분자를 포함한다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다:
MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 15; GenBank 수탁번호 CAA32915). 다른 구현예에서, KLK3 단백질은 서열번호: 15의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 15의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 15의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 15의 단편이다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다:
IVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCYGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 16). 다른 구현예에서, KLK3 단백질은 서열번호: 16의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 16의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 16의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 16의 단편이다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: IVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 17; GenBank 수탁번호 AAA59995.1). 다른 구현예에서, KLK3 단백질은 서열번호: 17의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 17의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 17의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 17의 단편이다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 다음 서열을 갖는 뉴클레오티드 분자에 의해 암호화된다: ggcccttgtcccaccgacctgtctacaaggactgtcctcgtggaccctcccctctgcacaggagctggaccctgaagtcccttcctaccggccaggactggagcccctacccctctgttggaatccctgcccaccttcttctggaagtcggctctggagacatttctctcttcttccaaagctgggaactgctatctgttatctgcctgtccaggtctgaaagataggattgcccaggcagaaactgggactgacctatctcactctctccctgcttttacccttagggtgattctgggggcccacttgtctgtaatggtgtgcttcaaggtatcacgtcatggggcagtgaaccatgtgccctgcccgaaaggccttccctgtacaccaaggtggtgcattaccggaagtggatcaaggacaccatcgtggccaacccctgagcacccctatcaagtccctattgtagtaaacttggaaccttggaaatgaccaggccaagactcaagcctccccagttctactgacctttgtccttaggtgtgaggtccagggttgctaggaaaagaaatcagcagacacaggtgtagaccagagtgtttcttaaatggtgtaattttgtcctctctgtgtcctggggaatactggccatgcctggagacatatcactcaatttctctgaggacacagttaggatggggtgtctgtgttatttgtgggatacagagatgaaagaggggtgggatcc (서열번호: 18; GenBank 수탁번호 X14810). 다른 구현예에서, KLK3 단백질은 서열번호: 18의 잔기 401..446, 1688..1847, 3477..3763, 3907..4043, 및 5413..5568에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 18의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 18의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 18의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 18의 단편에 의해 암호화된다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSWVILITELTMPALPMVLHGSLVPWRGGV (서열번호: 19; GenBank 수탁번호 NP_001019218) 다른 구현예에서, KLK3 단백질은 서열번호: 19의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 19의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 19의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 19의 단편이다. 각각의 가능성은 본원에 개시되는 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 다음 서열을 갖는 뉴클레오티드 분자에 의해 암호화된다: tatctgcctgtccaggtctgaaagataggattgcccaggcagaaactgggactgacctatctcactctctccctgcttttacccttagggtgattctgggggcccacttgtctgtaatggtgtgcttcaaggtatcacgtcatggggcagtgaaccatgtgccctgcccgaaaggccttccctgtacaccaaggtggtgcattaccggaagtggatcaaggacaccatcgtggccaacccctgagcacccctatcaaccccctattgtagtaaacttggaaccttggaaatgaccaggccaagactcaagcctccccagttctactgacctttgtccttaggtgtgaggtccagggttgctaggaaaagaaatcagcagacacaggtgtagaccagagtgtttcttaaatggtgtaattttgtcctctctgtgtcctggggaatactggccatgcctggagacatatcactcaatttctctgaggacacagataggatggggtgtctgtgttatttgtggggtacagagatgaaagaggggtgggatccacactgagagagtggagagtgacatgtgctggacactgtccatgaagcactgagcagaagctggaggcacaacgcaccagacactcacagcaaggatggagctgaaaacataacccactctgtcctggaggcactgggaagcctagagaaggctgtgagccaaggagggagggtcttcctttggcatgggatggggatgaagtaaggagagggactggaccccctggaagctgattcactatggggggaggtgtattgaagtcctccagacaaccctcagatttgatgatttcctagtagaactcacagaaataaagagctgttatactgtg (서열번호: 20; GenBank 수탁번호 NM_001030047). 다른 구현예에서, KLK3 단백질은 서열번호: 20의 잔기 42-758에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 20의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 20의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 20의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 20의 단편에 의해 암호화된다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRK (서열번호: 21; GenBank 수탁번호 NP_001025221). 다른 구현예에서, KLK3 단백질은 서열번호: 21의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 21의 변이체이다. 다른 구현예에서, KLK3 단백질의 서열은 서열번호: 21을 포함한다. 다른 구현예에서, KLK3 단백질은 서열번호: 21의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 21의 단편이다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 다음 서열을 갖는 뉴클레오티드 분자에 의해 암호화된다: agccccaagcttaccacctgcacccggagagctgtgtcaccatgtgggtcccggttgtcttcctcacccttccgtgacgtggattggtgctgcacccctcatcctgtctcggattgtgggaggctgggagtgcgagaagcattcccaaccctggcaggtgcttgtggcctctcgtggcagggcagtctgcggcggtgttctggtgcacccccagtgggtcctcacagctgcccactgcatcaggaagtgagtaggggcctggggtctggggagcaggtgtctgtgtcccagaggaataacagctgggcattttccccaggataacctctaaggccagccttgggactgggggagagagggaaagttctggttcaggtcacatggggaggcagggttggggctggaccaccctccccatggctgcctgggtctccatctgtgttcctctatgtctctttgtgtcgctttcattatgtctcttggtaactggcttcggttgtgtctctccgtgtgactattttgttctctctctccctctcttctctgtcttcagt (서열번호: 22). 다른 구현예에서, KLK3 단백질은 서열번호: 22의 잔기 42-758에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 22의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 22의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 22의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 22의 단편에 의해 암호화된다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 펩티드의 공급원인 KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 23) 다른 구현예에서, KLK3 단백질은 서열번호: 23의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 23의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 23의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 23의 단편이다.
다른 구현예에서, KLK3 단백질은 다음 서열을 갖는 뉴클레오티드 분자에 의해 암호화된다: gagtgacatgtgctggacactgtccatgaagcactgagcagaagctggaggcacaacgcaccagacactcacagcaaggatggagctgaaaacataacccactctgtcctggaggcactgggaagcctagagaaggctgtgagccaaggagggagggtcttcctttggcatgggatggggatgaagtaaggagagggactggaccccctggaagctgattcactatggggggaggtgtattgaagtcctccagacaaccctcagatttgatgatttcctagtagaactcacagaaataaagagctgttatactgtg (서열번호: 24). 다른 구현예에서, KLK3 단백질은 서열번호: 24의 잔기 42-758에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 24의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 24의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 24의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 24의 단편에 의해 암호화된다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRKPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 25; GenBank 수탁번호 NP_001025219). 다른 구현예에서, KLK3 단백질은 서열번호: 25의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 25의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 25의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 25의 단편이다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 다음 서열을 갖는 뉴클레오티드 분자에 의해 암호화된다: acactgtccatgaagcactgagcagaagctggaggcacaacgcaccagacactcacagcaaggatggagctgaaaacataacccactctgtcctggaggcactgggaagcctagagaaggctgtgagccaaggagggagggtcttcctttggcatgggatggggatgaagtaaggagagggactggaccccctggaagctgattcactatggggggaggtgtattgaagtcctccagacaaccctcagatttgatgatttcctagtagaactcacagaaataaagagctgttatactgtg (서열번호: 26; GenBank 수탁번호 NM_001030048). 다른 구현예에서, KLK3 단백질은 서열번호: 26의 잔기 42-758에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 26의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 26의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 26의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 26의 단편에 의해 암호화된다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 27; GenBank 수탁번호 NP_001639). 다른 구현예에서, KLK3 단백질은 서열번호: 27의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 27의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 27의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 27의 단편이다.
다른 구현예에서, KLK3 단백질은 다음 서열을 갖는 뉴클레오티드 분자에 의해 암호화된다: atactggccatgcctggagacatatcactcaatttctctgaggacacagataggatggggtgtctgtgttatttgtggggtacagagatgaaagaggggtgggatccacactgagagagtggagagtgacatgtgctggacactgtccatgaagcactgagcagaagctggaggcacaacgcaccagacactcacagcaaggatggagctgaaaacataacccactctgtcctggaggcactgggaagcctagagaaggctgtgagccaaggagggagggtcttcctttggcatgggatggggatgaagtaaggagagggactggaccccctggaagctgattcactatggggggaggtgtattgaagtcctccagacaaccctcagatttgatgatttcctagtagaactcacagaaataaagagctgttatactgtg (서열번호: 28; GenBank 수탁번호 NM_001648). 다른 구현예에서, KLK3 단백질은 서열번호: 28의 잔기 42-827에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 28의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 28의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 28의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 28의 단편에 의해 암호화된다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 29 GenBank 수탁번호 AAX29407.1). 다른 구현예에서, KLK3 단백질은 서열번호: 29의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 29의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 29의 이성질체이다. 다른 구현예에서, KLK3 단백질의 서열은 서열번호: 29를 포함한다. 다른 구현예에서, KLK3 단백질은 서열번호: 29의 단편이다.
다른 구현예에서, KLK3 단백질은 다음 서열을 갖는 뉴클레오티드 분자에 의해 암호화된다: ggggaatactggccatgcctggagacatatcactcaatttctctgaggacacagataggatggggtgtctgtgttatttgtggggtacagagatgaaagaggggtgggatccacactgagagagtggagagtgacatgtgctggacactgtccatgaagcactgagcagaagctggaggcacaacgcaccagacactcacagcaaggatggagctgaaaacataacccactctgtcctggaggcactgggaagcctagagaaggctgtgagccaaggagggagggtcttcctttggcatgggatggggatgaagtagggagagggactggaccccctggaagctgattcactatggggggaggtgtattgaagtcctccagacaaccctcagatttgatgatttcctagtagaactcacagaaataaagagctgttatactgcgaaaaaaaaaaaaaaaaaaaaaaaaaa (서열번호: 30; GenBank 수탁번호 BC056665). 다른 구현예에서, KLK3 단백질은 서열번호: 30의 잔기 47-832에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 30의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 30의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 30의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 30의 단편에 의해 암호화된다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVA (서열번호: 31; GenBank 수탁번호 AJ459782). 다른 구현예에서, KLK3 단백질은 서열번호: 31의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 31의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 31의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 31의 단편이다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSVSHPYSQDLEGKGEWGP (서열번호: 32, GenBank 수탁번호 AJ512346). 다른 구현예에서, KLK3 단백질은 서열번호: 32의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 32의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 32의 이성질체이다. 다른 구현예에서, KLK3 단백질의 서열은 서열번호: 32를 포함한다. 다른 구현예에서, KLK3 단백질은 서열번호: 32의 단편이다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGERGHGWGDAGEGASPDCQAEALSPPTQHPSPDRELGSFLSLPAPLQAHTPSPSILQQSSLPHQVPAPSHLPQNFLPIAQPAPCSQLLY (서열번호: 33; GenBank 수탁번호 AJ459784). 다른 구현예에서, KLK3 단백질은 서열번호: 33의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 33의 변이체이다. 다른 구현예에서, KLK3 단백질의 서열은 서열번호: 33을 포함한다. 다른 구현예에서, KLK3 단백질은 서열번호: 33의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 33의 단편이다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다: MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 34 GenBank 수탁번호 AJ459783). 다른 구현예에서, KLK3 단백질은 서열번호: 34의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 34의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 34의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 34의 단편이다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가지는 뉴클레오티드 분자에 의해 암호화된다: tccctgtacaccaaggtggtgcattaccggaagtggatcaaggacaccatcgtggccaacccctgagcacccctatcaactccctattgtagtaaacttggaaccttggaaatgaccaggccaagactcaggcctccccagttctactgacctttgtccttaggtgtgaggtccagggttgctaggaaaagaaatcagcagacacaggtgtagaccagagtgtttcttaaatggtgtaattttgtcctctctgtgtcctggggaatactggccatgcctggagacatatcactcaatttctctgaggacacagataggatggggtgtctgtgttatttgtggggtacagagatgaaagaggggtgggatccacactgagagagtggagagtgacatgtgctggacactgtccatgaagcactgagcagaagctggaggcacaacgcaccagacactcacagcaaggatggagctgaaaacataacccactctgtcctggaggcactgggaagcctagagaaggctgtgaaccaaggagggagggtcttcctttggcatgggatggggatgaagtaaggagagggactgaccccctggaagctgattcactatggggggaggtgtattgaagtcctccagacaaccctcagatttgatgatttcctagtagaactcacagaaataaagagctgttatactgtgaa (서열번호: 35; GenBank 수탁번호 X07730). 다른 구현예에서, KLK3 단백질은 서열번호: 35의 잔기 67-1088에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 35의 상동체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 35의 변이체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 35의 이성질체에 의해 암호화된다. 다른 구현예에서, KLK3 단백질은 서열번호: 35의 단편에 의해 암호화된다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다:
MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRK (서열번호: 36; GenBank 수탁번호 NM_001030050). 다른 구현예에서, KLK3 단백질은 서열번호: 36의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 36의 변이체이다. 다른 구현예에서, KLK3 단백질의 서열은 서열번호: 36을 포함한다. 다른 구현예에서, KLK3 단백질은 서열번호: 36의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 36의 단편이다.
다른 구현예에서, KLK3 펩티드의 공급원인 KLK3 단백질은 하기 서열을 가진다:
MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 37; GenBank 수탁번호 NM_001064049). 다른 구현예에서, KLK3 단백질은 서열번호: 37의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 37의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 37의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 37의 단편이다.
다른 구현예에서, KLK3 단백질은 하기 서열을 가진다:
MWVPVVFLTLSVTWIGAAPLILSRIVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRKPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCNGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (서열번호: 38; GenBank 수탁번호 NM_001030048). 다른 구현예에서, KLK3 단백질은 서열번호: 38의 상동체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 38의 변이체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 38의 이성질체이다. 다른 구현예에서, KLK3 단백질은 서열번호: 38의 단편이다.
다른 구현예에서, KLK3 단백질은 다음의 GenBank 수탁번호 중 하나로 제시되는 서열에 의해 암호화된다: BC005307, AJ310938, AJ310937, AF335478, AF335477, M27274, 및 M26663. 다른 구현예에서, KLK3 단백질은 위의 GenBank 수탁번호 중 하나로 제시되는 서열에 의해 암호화된다.
다른 구현예에서, KLK3 단백질은 다음의 GenBank 수탁번호 중 하나로 제시되는 서열에 의해 암호화된다: NM_001030050, NM_001030049, NM_001030048, NM_001030047, NM_001648, AJ459782, AJ512346, 또는 AJ459784. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다. 일 구현예에서, KLK3 단백질은 본원에 기재된 임의의 서열의 변형에 의해 암호화되는데, 여기에서 이 서열은 MWVPVVFLTLSVTWIGAAPLILSR(서열번호: 39)이 결여된다.
다른 구현예에서, KLK3 단백질은 다음의 GenBank 수탁번호 중 하나로 제시되는 서열을 포함하는 서열을 갖는다: X13943, X13942, X13940, X13941, 및 X13944.
다른 구현예에서, KLK3 단백질은 본 기술분야에 공지된 임의의 다른 KLK3 단백질이다.
다른 구현예에서, KLK3 펩티드는 본 기술분야에 공지된 임의의 다른 KLK3 펩티드이다. 다른 구현예에서, KLK3 펩티드는 본 기술분야에 공지된 임의의 다른 KLK3 펩티드의 단편이다. KLK3 펩티드의 각 유형은 본원에서 개시되는 방법 및 조성물의 개별적인 구현예를 나타낸다.
"KLK3 펩티드"는, 다른 구현예에서, 전장 KLK3 단백질을 가리킨다. 다른 구현예에서, 이 용어는 KLK3 단백질의 단편을 가리킨다. 다른 구현예에서, 이 용어는 KLK3 신호 펩티드가 결여된 KLK3 단백질의 단편을 가리킨다. 다른 구현예에서, 이 용어는 KLK3 신호 펩티드를 제외한 전체 KLK3 서열을 포함하는 KLK3 단백질을 가리킨다. "KLK3 신호 서열"은, 다른 구현예에서, KLK3 단백질 상의 천연에서 발견되는 임의의 신호 서열을 가리킨다. 다른 구현예에서, 본원에서 개시된 방법 및 조성물의 KLK3 단백질은 임의의 신호 서열을 포함하지 않는다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, 본원에서 개시된 방법 및 조성물에 사용하기 위한 KLK3 펩티드의 공급원인 칼리크레인-관련 펩티다제 3(KLK3 단백질)은 PSA 단백질이다. 다른 구현예에서, KLK3 단백질은 P-30 항원 단백질이다. 다른 구현예에서, KLK3 단백질은 감마-세미노프로테인 단백질(gamma-seminoprotein protein)이다. 다른 구현예에서, KLK3 단백질은 칼리크레인 3 단백질이다. 다른 구현예에서, KLK3 단백질은 세메노겔라제(semenogelase) 단백질이다. 다른 구현예에서, KLK3 단백질은 세미닌(seminin) 단백질이다. 다른 구현예에서, KLK3 단백질은 본 기술분야에 공지된 임의의 다른 유형의 KLK3 단백질이다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 스플라이스 변이체 1 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 스플라이스 변이체 2 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 스플라이스 변이체 3 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 전사 변이체 1 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 전사 변이체 2 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 전사 변이체 3 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 전사 변이체 4 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 전사 변이체 5 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 전사 변이체 6 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 스플라이스 변이체 RP5 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 본 기술분야에 공지된 임의의 다른 스플라이스 변이체 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 본 기술분야에 공지된 임의의 다른 전사 변이체 KLK3 단백질이다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, KLK3 단백질은 성숙 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 프로-KLK3 단백질이다. 다른 구현예에서, 리더 서열(leader sequence)은 본원에서 개시된 방법 및 조성물의 성숙 KLK3 단백질로부터 제거된다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, 본원에서 개시된 방법 및 조성물의 KLK3 펩티드의 공급원인 KLK3 단백질은 인간 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 영장류 KLK3 단백질이다. 다른 구현예에서, KLK3 단백질은 본 기술분야에 공지된 임의의 다른 종의 KLK3 단백질이다. 다른 구현예에서, 위의 KLK3 단백질 중 하나가 본 기술분야에서 "KLK3 단백질"로 언급된다.
일 구현예에서, 본원에 개시되는 PSA 단백질에 융합되는 절단된 LLO를 포함하는 본원에 개시되는 재조합 폴리펩티드는 다음을 포함하는 서열에 의해 암호화된다:
CTTCAAAGCCGTAATTTACGGAGGTTCCGCAAAAGATGAAGTTCAAATCATCGACGGCAACCTCGGAGACTTACGCGATATTTTGAAAAAAGGCGCTACTTTTAATCGAGAAACACCAGGAGTTCCCATTGCTTATACAACAAACTTCCTAAAAGACAATGAATTAGCTGTTATTAAAAACAACTCAGAATATATTGAAACAACTTCAAAAGCTTATACAGATGGAAAAATTAACATCGATCACTCTGGAGGATACGTTGCTCAATTCAACATTTCTTGGGATGAAGTAAATTATGATCTCGAG attgtgggaggctgggagtgcgagaagcattcccaaccctggcaggtgcttgtggcctctcgtggcagggcagtctgcggcggtgttctggtgcacccccagtgggtcctcacagctgcccactgcatcaggaacaaaagcgtgatcttgctgggtcggcacagcctgtttcatcctgaagacacaggccaggtatttcaggtcagccacagcttcccacacccgctctacgatatgagcctcctgaagaatcgattcctcaggccaggtgatgactccagccacgacctcatgctgctccgcctgtcagagcctgccgagctcacggatgctgtgaaggtcatggacctgcccacccaggagccagcactggggaccacctgctacgcctcaggctggggcagcattgaaccagaggagttcttgaccccaaagaaacttcagtgtgtggacctccatgttatttccaatgacgtgtgtgcgcaagttcaccctcagaaggtgaccaagttcatgctgtgtgctggacgctggacagggggcaaaagcacctgctcgggtgattctgggggcccacttgtctgttatggtgtgcttcaaggtatcacgtcatggggcagtgaaccatgtgccctgcccgaaaggccttccctgtacaccaaggtggtgcattaccggaagtggatcaaggacaccatcgtggccaacccc (서열번호: 91). 다른 구현예에서, 융합 단백질은 서열번호: 91의 상동체에 의해 암호화된다. 다른 구현예에서, 융합 단백질은 서열번호: 91의 변이체에 의해 암호화된다. 다른 구현예에서, 융합 단백질은 서열번호: 91의 이성질체에 의해 암호화된다. 일 구현예에서, 융합 단백질 내의 "ctcgag" 서열은 플라스미드에서 절단된 LLO에 종양 항원을 연결하기 위해 사용되는 Xho I 제한 부위를 나타낸다.
다른 구현예에서, 본원에 개시되는 PSA 단백질에 융합되는 절단된 LLO를 포함하는 본원에 개시되는 재조합 폴리펩티드는 다음 서열을 포함한다:
MKKIMLVFITLILVSLPIAQQTEAKDASAFNKENSISSMAPPASPPASPKTPIEKKHADEIDKYIQGLDYNKNNVLVYHGDAVTNVPPRKGYKDGNEYIVVEKKKKSINQNNADIQVVNAISSLTYPGALVKANSELVENQPDVLPVKRDSLTLSIDLPGMTNQDNKIVVKNATKSNVNNAVNTLVERWNEKYAQAYPNVSAKIDYDDEMAYSESQLIAKFGTAFKAVNNSLNVNFGAISEGKMQEEVISFKQIYYNVNVNEPTRPSRFFGKAVTKEQLQALGVNAENPPAYISSVAYGRQVYLKLSTNSHSTKVKAAFDAAVSGKSVSGDVELTNIIKNSSFKAVIYGGSAKDEVQIIDGNLGDLRDILKKGATFNRETPGVPIAYTTNFLKDNELAVIKNNSEYIETTSKAYTDGKINIDHSGGYVAQFNISWDEVNYDLE IVGGWECEKHSQPWQVLVASRGRAVCGGVLVHPQWVLTAAHCIRNKSVILLGRHSLFHPEDTGQVFQVSHSFPHPLYDMSLLKNRFLRPGDDSSHDLMLLRLSEPAELTDAVKVMDLPTQEPALGTTCYASGWGSIEPEEFLTPKKLQCVDLHVISNDVCAQVHPQKVTKFMLCAGRWTGGKSTCSGDSGGPLVCYGVLQGITSWGSEPCALPERPSLYTKVVHYRKWIKDTIVANP (PSA 서열은 밑줄침) (서열번호: 92). 다른 구현예에서, tLLO-PSA 융합 단백질은 서열번호: 92의 상동체이다. 다른 구현예에서, tLLO-PSA 융합 단백질은 서열번호: 92의 변이체이다. 다른 구현예에서, tLLO-PSA 융합 단백질은 서열번호: 92의 이성질체이다. 다른 구현예에서, tLLO-PSA 융합 단백질은 서열번호: 92의 단편이다.
일 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 종양 관련 항원을 암호화하는 핵산 분자를 포함하는데, 여기에서 항원은 HPV-E7 단백질을 포함한다. 일 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 HPV-E7 단백질을 암호화하는 핵산 분자를 포함한다.
일 구현예에서, 전체 E7 단백질 또는 이의 단편은 LLO 단백질 또는 이의 절단 또는 펩티드, ActA 단백질 또는 이의 절단 또는 펩티드, 또는 PEST-유사 서열-포함 펩티드에 융합되어 본 발명의 조성물 및 방법의 재조합 폴리펩티드 또는 펩티드를 생성한다. (전체 또는 단편의 공급원으로서) 이용되는 E7 단백질은, 다른 구현예에서, 서열
MHGDTPTLHEYMLDLQPETTDLYCYEQLNDSSEEEDEIDGPAGQAEPDRAHYNIVTFCCKCDSTLRLCVQSTHVDIRTLEDLLMGTLGIVCPICSQKP (서열번호: 40)을 갖는다. 다른 구현예에서, E7 단백질은 서열번호: 40의 상동체이다. 다른 구현예에서, E7 단백질은 서열번호: 40의 변이체이다. 다른 구현예에서, E7 단백질은 서열번호: 40의 이성질체이다. 다른 구현예에서, E7 단백질은 서열번호: 40의 단편이다. 다른 구현예에서, E7 단백질은 서열번호: 40의 상동체의 단편이다. 다른 구현예에서, E7 단백질은 서열번호: 40의 변이체의 단편이다. 다른 구현예에서, E7 단백질은 서열번호: 40의 이성질체의 단편이다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
다른 구현예에서, E7 단백질의 서열은 다음과 같다:
MHGPKATLQDIVLHLEPQNEIPVDLLCHEQLSDSEEENDEIDGVNHQHLPARRAEPQRHTMLCMCCKCEARIELVVESSADDLRAFQQLFLNTLSFVCPWCASQQ (서열번호: 41). 다른 구현예에서, E6 단백질은 서열번호: 41의 상동체이다. 다른 구현예에서, E6 단백질은 서열번호: 41의 변이체이다. 다른 구현예에서, E6 단백질은 서열번호: 41의 이성질체이다. 다른 구현예에서, E6 단백질은 서열번호: 41의 단편이다. 다른 구현예에서, E6 단백질은 서열번호: 41의 상동체의 단편이다. 다른 구현예에서, E6 단백질은 서열번호: 41의 변이체의 단편이다. 다른 구현예에서, E6 단백질은 서열번호: 41의 이성질체의 단편이다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
다른 구현예에서, E7 단백질은 다음의 GenBank 항목 중 하나로 제시되는 서열을 갖는다: M24215, NC_004500, V01116, X62843, 또는 M14119. 다른 구현예에서, E7 단백질은 위 GenBank 항목 중 하나로부터의 서열의 상동체이다. 다른 구현예에서, E7 단백질은 위 GenBank 항목 중 하나로부터의 서열의 변이체이다. 다른 구현예에서, E7 단백질은 위 GenBank 항목 중 하나로부터의 서열의 이성질체이다. 다른 구현예에서, E7 단백질은 위 GenBank 항목 중 하나로부터의 서열의 단편이다. 다른 구현예에서, E7 단백질은 위 GenBank 항목 중 하나로부터의 서열의 상동체의 단편이다. 다른 구현예에서, E7 단백질은 위 GenBank 항목 중 하나로부터의 서열의 변이체의 단편이다. 다른 구현예에서, E7 단백질은 위 GenBank 항목 중 하나로부터의 서열의 이성질체의 단편이다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
일 구현예에서, HPV 항원은 HPV 16이다. 다른 구현예에서, HPV는 HPV-18이다. 다른 구현예에서, HPV는 HPV-16 및 HPV-18로부터 선택된다. 다른 구현예에서, HPV는 HPV-31이다. 다른 구현예에서, HPV는 HPV-35이다. 다른 구현예에서, HPV는 HPV-39이다. 다른 구현예에서, HPV는 HPV-45이다. 다른 구현예에서, HPV는 HPV-51이다. 다른 구현예에서, HPV는 HPV-52이다. 다른 구현예에서, HPV는 HPV-58이다. 다른 구현예에서, HPV는 고-위험 HPV 유형이다. 다른 구현예에서, HPV는 점막 HPV 유형이다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
일 구현예에서, HPV E6는 HPV-16 유래이다. 다른 구현예에서, HPV E7는 HPV-16 유래이다. 다른 구현예에서, HPV E6는 HPV-18 유래이다. 다른 구현예에서, HPV E7는 HPV-18 유래이다. 다른 구현예에서, HPV-매개 질환, 장애 또는 증상을 치료 또는 개선시키기 위한 본 발명의 조성물 또는 방법에서 E7 항원 대신 또는 이에 추가하여 HPV E6 항원이 이용된다. 다른 구현예에서, HPV-16 E6 및 E7은 HPV-18 E6 및 E7 대신 또는 이와 조합하여 이용된다. 이러한 구현예에서, 재조합 리스테리아는 염색체로부터 HPV-16 E6 및 E7을, 그리고 플라스미드로부터 HPV-18 E6 및 E7을 발현할 수 있거나, 또는 그 역으로 발현할 수도 있다. 다른 구현예에서, HPV-16 E6 및 E7 항원 및 HPV-18 E6 및 E7 항원은 본원에서 개시된 재조합 리스테리아에 존재하는 플라스미드로부터 발현된다. 다른 구현예에서, HPV-16 E6 및 E7 항원 및 HPV-18 E6 및 E7 항원은 본원에서 개시된 재조합 리스테리아의 염색체로부터 발현된다. 다른 구현예에서, HPV-16 E6 및 E7 항원 및 HPV-18 E6 및 E7 항원은, 각각의 HPV 균주로부터의 각각의 E6 및 E7 항원이 플라스미드 또는 염색체로부터 발현되는 경우를 포함하여, 위의 구현예들의 임의의 조합으로 발현된다.
다른 구현예에서, 전체 E7 단백질 또는 이의 단편은 LLO 단백질, ActA 단백질 또는 PEST 아미노산 서열-포함 펩티드에 융합되어, 본원에 개시된 재조합 폴리펩티드를 생성한다. 일 구현예에서, (전체 또는 단편의 공급원으로서) 이용되는 E7 단백질은 서열번호: 93으로 제시되는 아미노산 서열을 포함한다
H G D T P T L H E Y M L D L Q P E T T D L Y C Y E Q L N D S S E E E D E I D G P A G Q A E P D R A H Y N I V T F C C K C D S T L R L C V Q S T H V D I R T L E D L L M G T L G I V C P I C S Q K P (서열번호: 93). 다른 구현예에서, E7 단백질은 서열번호: 93의 상동체이다. 다른 구현예에서, E7 단백질은 서열번호: 93의 변이체이다. 다른 구현예에서, E7 단백질은 서열번호: 93의 이성질체이다. 다른 구현예에서, E7 단백질은 서열번호: 93의 단편이다. 다른 구현예에서, E7 단백질은 서열번호: 93의 상동체의 단편이다. 다른 구현예에서, E7 단백질은 서열번호: 93의 변이체의 단편이다. 다른 구현예에서, E7 단백질은 서열번호: 93의 이성질체의 단편이다.
다른 구현예에서, E7 단백질에 융합된 절단된 LLO의 아미노산 서열은 다음 아미노산 서열을 포함한다:
MKKIMLVFITLILVSLPIAQQTEAKDASAFNKENSISSMAPPASPPASPKTPIEKKHADEIDKYIQGLDYNKNNVLVYHGDAVTNVPPRKGYKDGNEYIVVEKKKKSINQNNADIQVVNAISSLTYPGALVKANSELVENQPDVLPVKRDSLTLSIDLPGMTNQDNKIVVKNATKSNVNNAVNTLVERWNEKYAQAYPNVSAKIDYDDEMAYSESQLIAKFGTAFKAVNNSLNVNFGAISEGKMQEEVISFKQIYYNVNVNEPTRPSRFFGKAVTKEQLQALGVNAENPPAYISSVAYGRQVYLKLSTNSHSTKVKAAFDAAVSGKSVSGDVELTNIIKNSSFKAVIYGGSAKDEVQIIDGNLGDLRDILKKGATFNRETPGVPIAYTTNFLKDNELAVIKNNSEYIETTSKAYTDGKINIDHSGGYVAQFNISWDEVNYDLEHGDTPTLHEYMLDLQPETTDLYCYEQLNDSSEEEDEIDGPAGQAEPDRAHYNIVTFCCKCDSTLRLCVQSTHVDIRTLEDLLMGTLGIVCPICSQKP(서열번호: 94). 다른 구현예에서, tLLO-E7의 융합 단백질은 서열번호: 94의 상동체이다. 다른 구현예에서, 융합 단백질은 서열번호: 94의 변이체이다. 다른 구현예에서, tLLO-E7 융합 단백질은 서열번호: 94의 이성질체이다. 다른 구현예에서, tLLO-E7 융합 단백질은 서열번호: 94의 단편이다. 다른 구현예에서, tLLO-E7 융합 단백질은 서열번호: 94의 상동체의 단편이다. 다른 구현예에서, tLLO-E7 융합 단백질은 서열번호: 94의 변이체의 단편이다. 다른 구현예에서, tLLO-E7 융합 단백질은 서열번호: 94의 이성질체의 단편이다.
일 구현예에서, 본원에서 개시된 재조합 리스테리아 균주는 종양 관련 항원을 암호화하는 핵산 분자를 포함하는데, 여기에서 종양 관련 항원은 Her-2/neu 펩티드를 포함한다. 일 구현예에서, 종양 관련 항원은 Her-2/neu 항원을 포함한다. 일 구현예에서, Her-2/neu 펩티드는 키메라 Her-2/neu 항원(cHer-2)을 포함한다.
일 구현예에서, 약독화된 영양요구성 리스테리아 균주는 병독성 유전자 actA 의 결실에 의해 약독화되고 dal 유전자의 보완에 의해 생체내 및 시험관내 Her2/neu 발현을 위한 플라스미드를 보유하는 리스테리아 백신 벡터를 기반으로 한다. 일 구현예에서, 리스테리아 균주는 리스테리올리신 O(LLO)의 처음 441개 아미노산에 융합된 키메라 Her2/neu 단백질을 발현하고 분비한다. 다른 구현예에서, 리스테리아는 dal, dat 및 actA 내인성 유전자에서 돌연변이를 갖는 dal /dat/ actA 리스테리아이다. 다른 구현예에서, 돌연변이는 돌연변이 유전자의 결실, 절단 또는 불활성화이다. 다른 구현예에서, 리스테리아 균주는 형질전환 동물에서 HER2/neu를 향한 내성을 약화시키는 능력을 갖는 강한 항원 특이적 항-종양 반응을 행사한다. 다른 구현예에서, dal /dat/ actA 균주는 고도로 약독화되고 이전의 리스테리아 백신 세대보다 더 나은 안전성 프로파일을 가지는데, 이는 면역화된 마우스의 비장으로부터 더 신속하게 제거되기 때문이다. 다른 구현예에서, 리스테리아 균주는 이 백신의 항생제 저항성이고 더 병독성 버전인 Lm-LLO-ChHer2보다 형질전환 동물에서 종양 발생의 더 긴 지연을 야기한다(본원에 전체가 참조로 도입되는 미국출원 공개번호 2011/0142791 참조). 다른 구현예에서, 리스테리아 균주는 종양내 T 조절 세포(Treg)에서 유의미한 저하를 야기한다. 다른 구현예에서, LmddA 백신으로 처치된 종양에서 Treg의 더 낮은 빈도는 증가된 종양내 CD8/Treg 비율을 야기하는데, 이는 LmddA 백신으로의 면역화 후 더 유리한 종양 미세환경이 얻어질 수 있음을 제시한다. 일 구현예에서, 본 발명은 Her-2 키메라 단백질에 융합되거나 이의 단편에 융합된 LLO 단백질의 N-말단 단편을 포함하는 재조합 폴리펩티드를 제공한다. 일 구현예에서, 본 발명은 Her-2 키메라 단백질에 융합되거나 이의 단편에 융합된 LLO 단백질의 N-말단 단편으로 구성되는 재조합 폴리펩티드를 제공한다. 이 구현예에서, 이종 항원은 Her-2 키메라 단백질 또는 이의 단편이다.
다른 구현예에서, 본 발명의 방법 및 조성물의 Her-2 키메라 단백질은 인간 Her-2 키메라 단백질이다. 다른 구현예에서, Her-2 단백질은 마우스 Her-2 키메라 단백질이다. 다른 구현예에서, Her-2 단백질은 래트 Her-2 키메라 단백질이다. 다른 구현예에서, Her-2 단백질은 영장류 Her-2 키메라 단백질이다. 다른 구현예에서, Her-2 단백질은 인간 또는 본 기술분야에서 공지된 임의의 다른 동물종 또는 이의 조합의 Her-2 키메라 단백질이다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
다른 구현예에서, Her-2 단백질은 "HER-2/neu", "Erbb2", "v-erb-b2", "c-erb-b2", "neu", 또는 "cNeu"로서 언급되는 단백질이다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
일 구현예에서, Her2-neu 키메라 단백질은 종양 유전자의 MHC-클래스 I 에피토프의 클로스터를 보이는 Her2/neu 항원의 2 개의 세포외 단편 및 1 개의 세포내 단편을 보유하며, 다른 구현예에서, 키메라 단백질은 Her2/neu 항원의 3 개 H2Dq 및 적어도 17 개의 맵핑된 인간 MHC-클래스 I 에피토프를 보유한다(단편 EC1, EC2, 및 IC1)(도 45). 다른 구현예에서, 키메라 단백질은 적어도 13 개의 맵핑된 인간 MHC-클래스 I 에피토프를 보유한다(단편 EC2 및 IC1). 다른 구현예에서, 키메라 단백질은 적어도 14 개의 맵핑된 인간 MHC-클래스 I 에피토프를 보유한다(단편 EC1 및 IC1). 다른 구현예에서, 키메라 단백질은 적어도 9 개의 맵핑된 인간 MHC-클래스 I 에피토프를 보유한다(단편 EC1 및 IC2). 다른 구현예에서, Her2-neu 키메라 단백질은 비-용혈 리스테리올리신 O(LLO)에 융합된다. 다른 구현예에서, Her2-neu 키메라 단백질은 리스테리아-모노사이토게네스 리스테리올리신 O(LLO) 단백질의 처음 441개 아미노산에 융합되고 리스테리아 모노사이토게네스 약독화 영양요구성 균주 LmddA에 의해 발현 및 분비된다. 다른 구현예에서, 키메라 Her2/neu 항원/LLO 융합 단백질을 발현하는 본원에 개시되는 약독화 영양요구성 균주로부터의 융합 단백질 tLLO-ChHer2의 발현 및 분비는 8시간의 시험관내 성장 후 TCA 침전 세포 배양 상등액 내의 Lm-LLO-ChHer2에서와 비슷하다(도 45b).
일 구현예에서, CTL 활성은 미처리 동물 또는 비관련 리스테리아 백신이 주입된 마우스에서 검출되지 않는다(도 46a). 반면에 다른 구현예에서, 본원에 개시되는 약독화 영양요구성 균주는 야생형 FVB/N 마우스로부터의 비장세포에 의한 IFN-γ의 분비를 자극할 수 있다(도 46b).
다른 구현예에서, Her-2 키메라 단백질은 서열번호: 95에서 제시된 하기 핵산 서열에 의해 암호화된다.
ttttggcacagtctacaagggcatctggatccctgatggggagaatgtgaaaattccagtggccatcaaagtgttgagggaaaacacatcccccaaagccaacaaagaaatcttagacgaagcatacgtgatggctggtgtgggctccccatatgtctcccgccttctgggcatctgcctgacatccacggtgcagctggtgacacagcttatgccctatggctgcctcttagactaa (서열번호: 95).
다른 구현예에서, Her-2 키메라 단백질은 하기 서열을 갖는다:
T H L D M L R H L Y Q G C Q V V Q G N L E L T Y L P T N A S L S F L Q D I Q E V Q G Y V L I A H N Q V R Q V P L Q R L R I V R G T Q L F E D N Y A L A V L D N G D P L N N T T P V T G A S P G G L R E L Q L R S L T E I L K G G V L I Q R N P Q L C Y Q D T I L W K N I Q E F A G C K K I F G S L A F L P E S F D G D P A S N T A P L Q P E Q L Q V F E T L E E I T G Y L Y I S A W P D S L P D L S V F Q N L Q V I R G R I L H N G A Y S L T L Q G L G I S W L G L R S L R E L G S G L A L I H H N T H L C F V H T V P W D Q L F R N P H Q A L L H T A N R P E D E C V G E G L A C H Q L C A R G Q Q K I R K Y T M R R L L Q E T E L V E P L T P S G A M P N Q A Q M R I L K E T E L R K V K V L G S G A F G T V Y K G I W I P D G E N V K I P V A I K V L R E N T S P K A N K E I L D E A Y V M A G V G S P Y V S R L L G I C L T S T V Q L V T Q L M P Y G C L L D (서열번호: 96).
일 구현예에서, 본원에 개시되는 방법 및 조성물의 Her2 키메라 단백질 또는 이의 단편은 이의 신호 서열을 포함하지 않는다. 다른 구현예에서, 신호 서열의 생략은 신호 서열의 높은 소수성에 기인하여, Her2 단편이 리스테리아에서 성공적으로 발현될 수 있게 한다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
다른 구현예에서, 본 발명의 방법 및 조성물의 Her2 키메라 단백질의 단편은 이의 막통과 도메인(TM)을 포함하지 않는다. 일 구현예에서, TM의 생략은, TM의 높은 소수성에 기인하여, Her-2 단편이 리스테리아에서 성공적으로 발현될 수 있게 한다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
일 구현예에서, LmddA164는 cHER2에 융합된 tLLO를 암호화하는 오픈 리딩 프레임을 포함하는 핵산 서열을 포함하는데, 여기에서 핵산 서열은 서열번호: 97을 포함한다: cttcaaagccgtaatttacggaggttccgcaaaagatgaagttcaaatcatcgacggcaacctcggagacttacgcgatattttgaaaaaaggcgctacttttaatcgagaaacaccaggagttcccattgcttatacaacaaacttcctaaaagacaatgaattagctgttattaaaaacaactcagaatatattgaaacaacttcaaaagcttatacagatggaaaaattaacatcgatcactctggaggatacgttgctcaattcaacatttcttgggatgaagtaaattatgatctcgagTGGCACAGTCTACAAGGGCATCTGGATCCCTGATGGGGAGAATGTGAAAATTCCAGTGGCCATCAAAGTGTTGAGGGAAAACACATCCCCCAAAGCCAACAAAGAAATCTTAGACGAAGCATACGTGATGGCTGGTGTGGGCTCCCCATATGTCTCCCGCCTTCTGGGCATCTGCCTGACATCCACGGTGCAGCTGGTGACACAGCTTATGCCCTATGGCTGCCTCTTAGAC(서열번호: 97), 여기에서 대문자 서열은 cHER2를 암호화하며, 소문자 서열은 tLLO를 암호화하고, 밑줄친 "ctcgag"서열은 플라스미드에서 절단된 LLO에 종양 항원을 연결하는 데 사용되는 Xho I 제한 위치를 나타낸다. 다른 구현예에서, 플라스미드 pAdv168은 서열번호: 97을 포함한다. 일 구현예에서, 절단된 LLO-cHER2 융합은 서열번호: 97의 상동체이다. 다른 구현예에서, 절단된 LLO-cHER2 융합은 서열번호: 97의 변이체이다. 다른 구현예에서, 절단된 LLO-cHER2 융합은 서열번호: 97의 이성질체이다.
일 구현예에서, cHER2에 융합된 tLLO를 포함하는 재조합 단백질의 아미노산 서열은 서열번호: 98을 포함한다: MKKIMLVFITLILVSLPIAQQTEAKDASAFNKENSISSMAPPASPPASPKTPIEKKHADEIDKYIQGLDYNKNNVLVYHGDAVTNVPPRKGYKDGNEYIVVEKKKKSINQNNADIQVVNAISSLTYPGALVKANSELVENQPDVLPVKRDSLTLSIDLPGMTNQDNKIVVKNATKSNVNNAVNTLVERWNEKYAQAYPNVSAKIDYDDEMAYSESQLIAKFGTAFKAVNNSLNVNFGAISEGKMQEEVISFKQIYYNVNVNEPTRPSRFFGKAVTKEQLQALGVNAENPPAYISSVAYGRQVYLKLSTNSHSTKVKAAFDAAVSGKSVSGDVELTNIIKNSSFKAVIYGGSAKDEVQIIDGNLGDLRDILKKGATFNRETPGVPIAYTTNFLKDNELAVIKNNSEYIETTSKAYTDGKINIDHSGGYVAQFNISWDEVNYDLETHLDMLRHLYQGCQVVQGNLELTYLPTNASLSFLQDIQEVQGYVLIAHNQVRQVPLQRLRIVRGTQLFEDNYALAVLDNGDPLNNTTPVTGASPGGLRELQLRSLTEILKGGVLIQRNPQLCYQDTILWKNIQEFAGCKKIFGSLAFLPESFDGDPASNTAPLQPEQLQVFETLEEITGYLYISAWPDSLPDLSVFQNLQVIRGRILHNGAYSLTLQGLGISWLGLRSLRELGSGLALIHHNTHLCFVHTVPWDQLFRNPHQALLHTANRPEDECVGEGLACHQLCARGQQKIRKYTMRRLLQETELVEPLTPSGAMPNQAQMRILKETELRKVKVLGSGAFGTVYKGIWIPDGENVKIPVAIKVLRENTSPKANKEILDEAYVMAGVGSPYVSRLLGICLTSTVQLVTQLMPYGCLLD (서열번호: 98). 일 구현예에서, 절단된 LLO-cHER2 융합은 서열번호: 98의 상동체이다. 다른 구현예에서, 절단된 LLO-cHER2 융합은 서열번호: 98의 변이체이다. 다른 구현예에서, 절단된 LLO-cHER2 융합은 서열번호: 98의 이성질체이다.
종양형성 단백질 Her2/neu 내의 점 돌연변이 또는 아미노산 결실은, 이들 종양이 작은 단편 리스테리아-기반 백신 또는 트라스투주맙(Her2/neu 항원의 세포외 도메인에 위치하는 에피토프에 대한 단클론 항체)에 의해 표적화될 때, 저항성 종양 세포의 치료를 매개하는 것으로 보고되어 있다. 일 구현예에서, 종양유전자의 MHC-클래스 I 에피토프의 클러스터를 보이는 Her2/neu 항원의 2 개의 세포외 단편 및 1 개의 세포내 단편을 보유하는 키메라 Her2/neu 기반의 조성물이 개시된다. Her2/neu 항원의 3 개 H2Dq 및 적어도 17 개의 맵핑된 인간 MHC-클래스 I 에피토프를 보유하는 이 키메라 단백질은 리스테리아 - 모노사이토게네스 리스테리올리신 O 단백질의 처음 441개 아미노산에 융합되고 리스테리아 모노사이토게네스 약독화 균주 LmddA에 의해 발현 및 분비된다.
다른 구현예에서, 관심 항원은 KLK9 폴리펩티드이다.
다른 구현예에서, 종양-관련 항원은 HPV-E7이다. 다른 구현예에서, 항원은 HPV-E6이다. 다른 구현예에서, 항원은 Her-2이다. 다른 구현예에서, 항원은 NY-ESO-1이다. 다른 구현예에서, 항원은 텔로머라제이다. 다른 구현예에서, 항원은 SCCE이다. 다른 구현예에서, 항원은 WT-1이다. 다른 구현예에서, 항원은 HIV-1 Gag이다. 다른 구현예에서, 항원은 단백질분해효소 3이다. 다른 구현예에서, 항원은 티로시나제 관련 단백질 2이다. 다른 구현예에서, 항원은 PSA(전립선-특이적 항원)이다. 다른 구현예에서, 항원은 E7, E6, Her-2, NY-ESO-1, 텔로머라제, SCCE, WT-1, HIV-1 Gag, 단백질분해효소 3, 티로시나제 관련 단백질 2, PSA(전립선-특이적 항원)으로부터 선택된다. 다른 구현예에서, 항원은 종양-관련 항원이다. 다른 구현예에서, 항원은 감염성 질환 항원이다.
다른 구현예에서, 종양-관련 항원은 혈관형성 항원이다. 다른 구현예에서, 혈관형성 항원은 종양 혈관형성 맥관구조에서 혈관주위세포(pericyte) 및 활성화된 혈관주위세포 둘 다에서 발현되는데, 이는 또 다른 구현예에서는, 생체내 혈관신생과 관련된다. 다른 구현예에서, 혈관형성 항원은 HMW-MAA이다. 다른 구현예에서, 혈관형성 항원은 본 기술분야에 공지된 것이고 본원에서 참고로 인용된 WO2010/102140에 개시된다.
다른 구현예에서, 항원은 진균 병원체, 박테리아, 기생충, 연충(helminth) 또는 바이러스로부터 유래한다. 다른 구현예에서, 항원은 파상풍 톡소이드, 인플루엔자 바이러스 유래 헤마글루티닌 분자, 디프테리아 톡소이드, HIV gp120, HIV gag 단백질, IgA 프로테아제, 인슐린 펩티드 B, 스폰고스포라 수브테라네아 항원, 비브리오스(vibriose) 항원, 살모넬라 항원, 폐렴구균 항원, 호흡기 세포융합 바이러스 항원, 헤모필루스 인플루엔자 외막 단백질, 헬리코박터 파이로리 우레아제, 수막염균 ( Neisseria meningitidis ) 필린, 임균(N. gonorrhoeae) 필린, 흑색종-관련 항원(TRP-2, MAGE-1, MAGE-3, gp-100, 티로시나제, MART-1, HSP-70, 베타-HCG), HPV-16, -18, -31 , -33, -35 또는 -45 유형 인간 유두종 바이러스 유래 인간 유두종 바이러스 항원 E1 및 E2, 종양 항원 CEA, ras 단백질, 돌연변이되거나 그 반대, p53 단백질, 돌연변이되거나 그 반대, Muc1, 메소텔린(mesothelin), EGFRVIII 또는 pSA로부터 선택된다.
다른 구현예에서, 항원은 다음 질환 중 하나와 관련된다: 콜레라, 디프테리아, 헤모필루스, A 형 간염, B 형 간염, 인플루엔자, 홍역, 수막염, 유행성 이하선염, 백일해(pertussis), 천연두, 폐렴구균성 폐렴, 소아마비, 광견병, 풍진, 파상풍, 결핵, 장티푸스, 수두-대상 포진, 백일기침(whooping cough), 황열병, 애디슨 병 유래 면역원 및 항원, 알러지, 아나필락시스, 브루톤 증후군, 고형 및 혈액 매개 종양을 비롯한 암, 습진, 하시모토 갑상선염, 다발성 근염, 피부 근염, 1 형 당뇨병, 후천성 면역결핍 증후군, 신장, 심장, 췌장, 폐, 뼈, 간 이식 등의 이식 거부, 그레이브스 병(Graves' disease), 다내분비성(polyendocrine) 자가면역 질환, 간염, 현미경적 다발성 동맥염, 결절성 다발성 동맥염, 천포창, 원발성 담즙성 간경변, 악성 빈혈, 소아 지방변증, 항체-매개 신염, 사구체 신염, 류마티스 질환, 전신성 홍반성 낭창, 류마티스 관절염, 혈청음성 척추관절병증, 비염, 쇼그렌 증후군(sjogren's syndrome), 전신성 경화증, 경화성 담관염, 베게너 육아종증(Wegener's granulomatosis), 포진성 피부염, 건선, 백반증, 다발성 경화증, 뇌척수염, 길렝-바레 증후군(Guillain-Barre syndrome), 중증 근무력증, 램버트-이튼 증후군(Lambert-Eaton syndrome), 공막(sclera), 상공막(episclera), 포도막염, 만성 피부 점막 칸디다증, 두드러기, 유아기의 일시적인 저감마글로불린혈증, 골수종, X-연결 하이퍼 IgM 증후군, 비스코트-알드리치 증후군(Wiskott-Aldrich syndrome), 모세혈관확장성 운동실조, 자가면역 용혈성 빈혈, 자가면역 혈소판 감소증, 자가면역 호중구 감소증, 발덴스트롬 마크로글로불린혈증(Waldenstrom's macroglobulinemia), 아밀로이드증, 만성 림프구성 백혈병, 비-호지킨 림프종(non-Hodgkin's lymphoma), 말라리아 환상포자소체(malarial circumsporozite) 단백질, 미생물 항원, 바이러스 항원, 자가항원 및 리스테리아증. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, 본원에 개시되는 이종 항원은 종양-관련 항원으로, 일 구현예에서는 다음의 종양 항원 중 하나이다: MAGE(흑색종-관련 항원 E) 단백질, 예를 들어, MAGE 1, MAGE 2, MAGE 3, MAGE 4, 티로시나제; 돌연변이체 ras 단백질; 돌연변이체 p53 단백질; p97 흑색종 항원, 진행 암과 관련된 ras 펩티드 또는 p53 펩티드; 자궁경부암과 관련된 HPV 16/18 항원, 유방암과 관련된 KLH 항원, 대장암과 관련된 CEA(암 배아 항원), gp100, 흑색종과 관련된 MART1 항원, 또는 전립선암과 관련된 PSA 항원. 다른 구현예에서, 본원에 개시된 조성물 및 방법을 위한 항원은 흑색종-관련 항원으로, 일 구현예에서, TRP-2, MAGE-1, MAGE-3, gp-100, 티로시나제, HSP-70, 베타-HCG, 또는 이들의 조합이다. 다른 구현예에서, 종양 관련 항원은 혈관형성 항원이다.
일 구현예에서, 항원은 전체가 참조로 본원에 통합된 미국 특허 출원 공개 제US2011/0142791호에 기재된 키메라 Her2 항원이다.
다른 구현예에서, 이종 항원은 감염성 질환 항원이다. 일 구현예에서, 항원은 자가 항원 또는 자기-항원이다.
다른 구현예에서, 이종 항원은 진균류 병원체, 박테리아, 기생충, 연충 또는 바이러스로부터 유래된다. 다른 구현예에서, 항원은 파상풍 톡소이드, 인플루엔자 바이러스 유래 헤마글루티닌 분자, 디프테리아 톡소이드, HIV gp120, HIV gag 단백질, IgA 프로테아제, 인슐린 펩타이드 B, 스폰고스포라 수브테라네아 항원, 비브리오스(vibriose) 항원, 살모넬라 항원, 폐렴 구균 항원, 호흡기 세포융합 바이러스 항원, 헤모필루스 인플루엔자 외막 단백질, 헬리코박터 파이로리 우레아제, 수막염균 필린, 임균 필린, HPV-16, -18, -31 , -33, -35 또는 -45 형 인간 유두종 바이러스 유래 인간 유두종 바이러스 항원 E1 및 E2, 또는 이들의 조합으로부터 선택된다.
본원에 개시된 방법 및 조성물의 다른 구현예에서, "핵산" 또는 "뉴클레오티드"는 적어도 두 개의 염기-당-인산염 조합의 스트링을 의미한다. 이 용어는, 일 구현예에서, DNA 및 RNA를 포함한다. "뉴클레오티드"는, 일 구현예에서, 핵산 고분자의 단량체 단위를 가리킨다. RNA는, 일 구현예에서, tRNA(전이 RNA), snRNA(작은 핵 RNA), rRNA(리보솜 RNA), mRNA(메신저 RNA), 안티-센스 RNA, 작은 억제성 RNA(siRNA), 마이크로 RNA(miRNA) 및 리보자임의 형태일 수 있다. siRNA 및 miRNA의 사용이 기재되어 있다(Caudy AA 외, Genes & Devel 16:2491-96 및 여기에 인용된 참조 문헌). DNA는 플라스미드 DNA, 바이러스 DNA, 선형 DNA, 또는 염색체 DNA 또는 이들 그룹의 유도체의 형태일 수 있다. 또한, 이들 형태의 DNA 및 RNA는 단일, 이중, 삼중 또는 사중 가닥일 수 있다. 이 용어는 또한, 다른 구현예에서, 다른 유형의 골격을 포함하지만 동일한 염기를 포함할 수 있는 인공 핵산을 포함한다. 일 구현예에서, 인공 핵산은 PNA(펩티드 핵산)이다. PNA는 펩티드 골격 및 뉴클레오티드 염기를 포함하며, 일 구현예에서, DNA 및 RNA 분자 둘 다에 결합할 수 있다. 다른 구현예에서, 뉴클레오티드는 변형된 옥세탄이다. 다른 구현예에서, 뉴클레오티드는 하나 이상의 포스포디에스테르 결합이 포스포로티오에이트 결합으로 치환되어 변형된다. 다른 구현예에서, 인공 핵산은 본 분야에서 공지된 자생 핵산의 인산염 골격의 임의의 다른 변이체를 포함한다. 포스포로티오에이트 핵산 및 PNA의 사용은 본 분야의 당업자에게 알려져 있으며, 예를 들어, Neilsen PE의 문헌(Curr Opin Struct Biol 9: 353-57); 및 Raz NK 등의 문헌(Biochem Biophys Res Commun. 297: 1075-84)에 기재되어 있다. 핵산의 생산 및 사용은 본 분야의 당업자에게 알려져 있으며, 예를 들어, Molecular Cloning, (2001), Sambrook and Russell, eds. 및 Methods in Enzymology: Methods for molecular cloning in in eukaryotic cells(2003) Purchio 및 G. C. Fareed에 기재되어 있다. 각 핵산 유도체는 본원에 개시되는 개별 구현예를 나타낸다.
일 구현예에서, 용어 "올리고뉴클레오티드"는 용어 "핵산"과 상호교환 가능하며, 원핵 서열, 진핵 mRNA, 진핵 mRNA 유래 cDNA, 진핵 생물(예를 들어, 포유류) DNA 유래의 게놈 DNA 서열, 및 심지어 합성 DNA 서열을 포함할 수 있지만 이에 제한되지 않는 분자를 의미할 수도 있다. 이 용어는 또한 DNA 및 RNA의 임의의 공지된 염기 유사체를 포함하는 서열을 가리킨다.
다른 구현예에서, 본원에 개시되는 구성체 또는 핵산 분자는, 상동성 재조합을 사용하여 리스테리아 염색체에 통합된다. 상동성 재조합을 위한 기술은 본 분야에서 널리 공지되어 있으며, 예를 들어, Baloglu S, Boyle SM, 외 (Immune responses of mice to vaccinia virus recombinants expressing either Listeria monocytogenes partial listeriolysin or Brucella abortus ribosomal L7/L12 protein. Vet Microbiol 2005, 109(1-2): 11-7); 및 Jiang LL, Song HH, 외,(Characterization of a mutant Listeriamonocytogenes strain expressing green fluorescent protein. Acta Biochim Biophys Sin(Shanghai) 2005, 37(1): 19-24)에 기재되어 있다. 다른 구현예에서, 상동성 재조합은 미국 특허번호 제6,855,320호에 기재된 바와 같이 수행된다. 이 경우, E7을 발현하는 재조합 Lm 균주는 유전자 산물의 분비를 보장하도록 hly 신호 서열을 포함하고 hly 프로모터의 조절 하에 E7 유전자의 염색체 통합에 의해 제조되어, Lm-AZ/E7이라 칭하는 재조합체를 생성하였다. 다른 구현예에서, 온도 민감성 플라스미드가 재조합체를 선별하기 위해 사용된다. 각 기술은 본 발명의 개별 구현예를 나타낸다.
다른 구현예에서, 구성체 또는 핵산 분자는 트랜스포손 삽입을 사용하여 리스테리아 염색체에 통합된다. 트랜스포존 삽입을 위한 기술은 본 분야에서 널리 공지되어 있으며, 그 중에서, Sun 등 (Infection and Immunity 1990, 58: 3770-3778)에 의해 DP-L967의 구축에 기재되어 있다. 트랜스포존 돌연변이 생성은, 다른 구현예에서, 안정한 게놈 삽입 돌연변이체가 형성될 수 있는 이점을 갖지만 외래 유전자가 삽입된 게놈에서의 위치가 알려지지 않은 단점을 갖는다.
다른 구현예에서, 구성체 또는 핵산 분자는 파아지 통합 부위를 사용하여 리스테리아 염색체 내로 통합된다(Lauer P, Chow MY 외, Construction, characterization, and use of two Listeria monocytogenes site-specific phage integration vectors. J Bacteriol 2002; 184(15):4177-86). 이 방법의 특정 구현예에서, 박테리오파아지(예를 들어, U153 또는 PSA 리스테리오파아지)의 인테그라아제 유전자 및 부착 부위는 이종 유전자를 상응하는 부착 부위 내로 삽입하기 위해 사용되며, 이는 게놈 내에서의 임의의 적절한 부위일 수 있다(예를 들어, arg tRNA 유전자의 3' 말단 또는 comK). 다른 구현예에서, 내인성 프로파아지는 구성체 또는 이종 유전자의 통합 전에 이용되는 부착 부위로부터 처리된다. 다른 구현예에서, 이 방법은 단일-카피 통합물을 야기한다. 다른 구현예에서, 본 발명은 임상적 응용을 위한 파아지 기반의 염색체 통합 시스템을 추가로 포함하는데, 여기에서 d-알라닌 라세미화효소를 포함하지만 이에 한정되지 않는 필수 효소를 위한 영양요구성 숙주 균주, 예를 들어, Lmdal(-)dat(-)를 사용할 수 있다. 다른 구현예에서는, "파아지 처리 단계"를 피하도록, PSA를 기반으로 하는 파아지 통합 시스템이 사용된다. 이는, 다른 구현예에서, 통합된 유전자를 유지하기 위해 항생제에 의한 지속적인 선별을 필요로 한다. 그러므로, 다른 구현예에서, 본 발명은 항생제로의 선별을 필요로 하지 않는 파아지 기반 염색체 통합 시스템의 구축을 가능하게 한다. 대신, 영양요구성 숙주 균주가 상보화될 수 있다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
본원에 개시된 방법 및 조성물의 일 구현예에서, 용어 "재조합 위치" 또는 "위치-특이적 재조합 위치"는 재조합 위치에 인접한 핵산 세그먼트의 교환 또는 절단을 매개하는 재조합효소(일부 경우에, 관련 단백질과 함께)에 의해 인식되는 핵산 분자 내의 염기 서열을 지칭한다. 재조합효소 및 관련 단백질은 총칭하여 "재조합 단백질"이라 칭하며, 예를 들어, Landy, A., (Current Opinion in Genetics & Development) 3:699-707; 1993)를 참조한다.
"파아지 발현 벡터" 또는 "파아지미드"는 시험관내 또는 생체내, 구성적으로 또는 유도성으로, 원핵, 효모, 진균류, 식물, 곤충 또는 포유류 세포를 포함하는 임의의 세포에서 본원에 개시되는 바와 같은 방법 및 조성물의 핵산 서열을 발현하는 목적을 위한 임의의 파아지-기반 재조합 발현 시스템을 의미한다. 파아지 발현 벡터는 전형적으로 박테리아 세포내에서 복제되고, 적절한 조건 하에서 파아지 입자를 생산할 수 있다. 이 용어는 선형 또는 원형 발현 시스템을 포함하고 에피솜을 유지하거나 숙주 세포 게놈 내로 통합하는 파아지-기반 발현 벡터를 둘 다 포함한다.
일 구현예에서, 본원에서 사용된 용어 "작동 가능하게 연결된"은 전사 및 번역 조절 핵산이 전사가 개시되는 방식으로 임의의 코딩 서열에 대하여 위치하는 것을 의미한다. 일반적으로, 이는 프로모터 및 전사 개시 또는 개시 서열이 코딩 영역에 대하여 5'에 위치하는 것을 의미할 것이다.
일 구현예에서, "오픈 리딩 프레임"또는 "ORF"는 단백질을 잠재적으로 암호화할 수 있는 염기의 서열을 포함하는 생물의 게놈 부분이다. 다른 구현예에서, ORF의 시작 및 정지 말단은 mRNA의 말단과 동등하지 않으나, 이들은 보통 mRNA 내에 포함된다. 일 구현예에서, ORF는 유전자의 시작-코드 서열(개시 코돈) 및 정지-코돈 서열(종결 코돈) 사이에 위치한다. 그러므로, 일 구현예에서, 내인성 폴리펩티드와 함께 오픈 리딩 프레임으로서 게놈 내로 작동 가능하게 통합되는 핵산 분자는 내인성 폴리펩티드와 동일한 오픈 리딩 프레임에서 게놈 내로 통합되는 핵산 분자이다.
일 구현예에서, 본 발명은 링커 서열을 포함하는 융합 폴리펩티드를 제공한다. 일 구현예에서, "링커 서열"은 두 개의 이종 폴리펩티드, 또는 이의 단편 또는 도메인을 연결하는 아미노산 서열을 의미한다. 일반적으로, 본원에서 사용되는 링커는 폴리펩티드를 공유적으로 연결하여 융합 폴리펩티드를 형성하는 아미노산 서열이다. 링커는 전형적으로 디스플레이 단백질 및 오픈 리딩 프레임에 의해 암호화되는 아미노산 서열을 포함하는 융합 단백질을 생성하도록 디스플레이 벡터로부터 리포터 유전자를 제거한 후 나머지 재조합 신호로부터 번역되는 아미노산을 포함한다. 해당 분야의 당업자에게 인정되는 바와 같이, 링커는 글리신 및 기타 소형 중성 아미노산과 같은 추가적인 아미노산을 포함할 수 있다.
일 구현예에서, "내인성"은 참조 생물체 내에서 발생 또는 유래하였거나 참조 생물체 내의 원인으로부터 발생된 것을 말한다. 다른 구현예에서, 내인성은 원생을 의미한다.
"안정적으로 유지된다"는 것은, 다른 구현예에서, 검출 가능한 손실 없이 10 세대 동안 선택(예를 들어, 항생제 선택)의 부재중 핵산 분자 또는 플라스미드의 유지를 가리킨다. 다른 구현예에서, 기간은 15 세대이다. 다른 구현예에서, 기간은 20 세대이다. 다른 구현예에서, 기간은 25 세대이다. 다른 구현예에서, 기간은 30 세대이다. 다른 구현예에서, 기간은 40 세대이다. 다른 구현예에서, 기간은 50 세대이다. 다른 구현예에서, 기간은 60 세대이다. 다른 구현예에서, 기간은 80 세대이다. 다른 구현예에서, 기간은 100 세대이다. 다른 구현예에서, 기간은 150 세대이다. 다른 구현예에서, 기간은 200 세대이다. 다른 구현예에서, 기간은 300 세대이다. 다른 구현예에서, 기간은 500 세대이다. 다른 구현예에서, 기간은 세대들보다 길다. 다른 구현예에서, 핵산 분자 또는 플라스미드는 시험관내 (예를 들어, 배양에서) 안정적으로 유지된다. 다른 구현예에서, 핵산 분자 또는 플라스미드는 생체내에서 안정적으로 유지된다. 다른 구현예에서, 핵산 분자 또는 플라스미드는 시험관내 및 생체내 둘 다에서 안정적으로 유지된다.
다른 구현예에서, 본원에 개시된 방법 및 조성물의 재조합 리스테리아 균주는 내인성 ActA 서열과 함께 오픈 리딩 프레임으로서 리스테리아 게놈으로 작동 가능하게 통합되는 핵산 분자를 포함한다. 다른 구현예에서, 본원에 개시된 방법 및 조성물의 재조합 리스테리아 균주는 ActA 또는 절단된 ActA에 융합된 항원을 포함하는 융합 단백질을 암호화하는 핵산 분자를 포함하는 에피솜 발현 벡터를 포함한다. 일 구현예에서, 항원의 발현 및 분비는 actA 프로모터 및 ActA 신호 서열의 조절 하에 있으며 ActA의 1-233 아미노산(절단된 ActA 또는 tActA)에 융합되어 발현된다. 다른 구현예에서, 절단된 ActA는, 이의 전체가 본원에 참조로서 통합된 미국 특허 일련번호 제7,655,238호에 기재된 바와 같이 야생형 ActA 단백질의 처음 390개 아미노산으로 구성된다. 다른 구현예에서, 절단된 ActA는 ActA-N100 또는 이의 변형된 버전(ActA-N100*으로서 언급됨)으로, 이는 미국 특허 공개 일련 번호 제2014/0186387호에 기재된 바와 같이 PEST 모티프가 결실되고 비보존성 QDNKR 치환을 포함한다.
또 다른 구현예에서, "기능적 단편"은 면역원성 단편이며 대상에 단독으로 또는 본원에서 제공된 백신으로 투여될 때 면역 반응을 유발한다. 다른 구현예에서, 기능적 단편은 당업자에 의해 이해되고 본원에서 더 개시되는 바와 같이, 생물학적 활성을 가지고 있다.
본원에 개시되는 방법 및 조성물의 재조합 리스테리아 균주는, 다른 구현예에서, 재조합 리스테리아 모노사이토게네스 균주이다. 다른 구현예에서, 리스테리아 균주는 재조합 리스테리아 실리게리 균주이다. 다른 구현예에서, 리스테리아 균주는 재조합 리스테리아 그라이 균주이다. 다른 구현예에서, 리스테리아 균주는 재조합 리스테리아 이바노비 균주이다. 다른 구현예에서, 리스테리아 균주는 재조합 리스테리아 무라이 균주이다. 다른 구현예에서, 리스테리아 균주는 재조합 리스테리아 웰쉬메리 균주이다. 다른 구현예에서, 리스테리아 균주는 당해 분야에 공지된 임의의 다른 리스테리아 종의 재조합 균주이다.
다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 동물 숙주를 통해 계대된다. 다른 구현예에서, 계대는 백신 벡터로서 균주의 효능을 극대화한다. 다른 구현예에서, 계대는 리스테리아 균주의 면역원성을 안정화시킨다. 다른 구현예에서, 계대는 리스테리아 균주의 독성을 안정화시킨다. 다른 구현예에서, 계대는 리스테리아 균주의 면역원성을 증가시킨다. 다른 구현예에서, 계대는 리스테리아 균주의 독성을 증가시킨다. 다른 구현예에서, 계대는 리스테리아 균주의 불안정한 서브-균주를 제거한다. 다른 구현예에서, 계대는 리스테리아 균주의 불안정한 서브-균주의 유병률을 감소시킨다. 다른 구현예에서, 리스테리아 균주는 항원-포함 재조합 펩티드를 암호화하는 유전자의 게놈 삽입을 포함한다. 다른 구현예에서, 리스테리아 균주는 항원-포함 재조합 펩티드를 암호화하는 유전자를 포함하는 플라스미드를 운반한다. 다른 구현예에서, 계대는 본원에 기재된 바와 같이 수행된다. 다른 구현예에서, 계대는 당해 분야에 공지된 임의의 다른 방법에 의해 수행된다. 다른 구현예에서, 본원에 개시되는 재조합 리스테리아 균주는 동물 숙주를 통해 계대되지 않는다.
다른 구현예에서, 본원에 개시되는 재조합 핵산은, 리스테리아 균주에서 암호화된 펩티드의 발현을 구동하는 프로모터/조절 서열에 작동 가능하게 연결된다. 유전자의 기본구성 발현을 구동하는 데 유용한 프로모터/조절 서열은, 당해 분야에 공지되어 있으며, 예를 들어, 리스테리아의 PhlyA,PActA,및 p60 프로모터, Streptococcus bac 프로모터, Streptomyces griseus sgiA 프로모터, 및 B. thuringiensis phaZ 프로모터를 포함하지만, 이에 한정되지 않는다.
다른 구현예에서, 본원에 개시되는 펩티드를 암호화하는 핵산의 유도 가능 및 조직 특이적 발현은, 유도 가능 또는 조직 특이적 프로모터/조절 서열의 조절 하에 펩티드를 암호화하는 핵산을 배치함으로써 달성된다. 이 목적에 유용한 조직 특이적 또는 유도 가능 프로모터/조절 서열의 예는, MMTV LTR 유도 가능 프로모터 및 SV40 만기 인핸서/프로모터를 포함하지만, 이에 한정되지 않는다. 다른 구현예에서는, 금속, 글루코코르티코이드 등의 유도제에 반응하여 유도되는 프로모터를 이용한다. 따라서, 본 발명이 이에 작동 가능하게 연결된 원하는 단백질의 발현을 구동할 수 있는, 알려져 있거나 알려져 있지 않은 임의의 프로모터/조절 서열의 사용을 포함한다는 점이 인정될 것이다. 당업자는 용어 "이종"이 참조 종과는 상이한 종으로부터 유래되는 핵산, 아미노산, 펩티드, 폴리펩티드, 또는 단백질을 포괄한다는 것을 인정할 것이다. 따라서, 예를 들어, 이종 폴리펩티드를 발현하는 리스테리아 균주는 일 구현예에서 리스테리아 균주에 대하여 원생 또는 내인성이 아닌 폴리펩티드를 발현하거나, 다른 구현예에서는 리스테리아 균주에 의해 정상적으로 발현되지 않는 폴리펩티드를 발현하거나, 또 다른 구현예에서는 리스테리아 균주 외의 다른 공급원으로부터의 폴리펩티드를 발현할 것이다. 다른 구현예에서, "이종"은 동일한 종 내의 상이한 생물체로부터 유래된 것을 기술하기 위해 사용될 수 있다. 또 다른 구현예에서, 이종 항원은 리스테리아의 재조합 균주에 의해 발현되고, 가공되어 포유류 세포가 재조합 균주에 의해 감염될 때 세포독성 T 세포에 제시된다. 또 다른 구현예에서, 리스테리아 종에 의해 발현된 이종 항원은 그것이 포유류에서 자연적으로 발현되는 변형되지 않은 항원 또는 단백질을 인식하는 T-세포 반응을 초래하는 한, 감염성 물질이나 종양 세포에서 대응하는 변형되지 않은 항원 또는 단백질과 정확히 일치할 필요는 없다.
당업자는 용어 "에피솜 발현 벡터"가 선형 또는 원형일 수 있으며, 일반적으로 이중-가닥 형태이고, 또한 박테리아나 세포의 게놈에 통합되는 것과는 대조적으로 세포 또는 숙주 박테리아의 세포질에 존재한다는 점에서 염색체외적인 핵산 벡터를 포괄한다는 것을 인정할 것이다. 일 구현예에서, 에피솜 발현 벡터는 관심있는 유전자를 포함한다. 다른 구현예에서, 에피솜 벡터는 박테리아 세포질에서 다중 복사체로서 지속되어, 관심있는 유전자의 증폭이 초래되고, 또 다른 구현예에서는 필요한 경우 바이러스성 작용전달 인자가 공급된다. 다른 구현예에서, 에피솜 발현 벡터는 본원에서 플라스미드로 지칭될 수 있다. 다른 구현예에서, "통합 플라스미드"는 숙주 게놈으로 해당 서열 자체의 삽입 또는 운반되는 관심있는 유전자의 삽입을 표적으로 하는 서열을 포함한다. 다른 구현예에서, 삽입된 관심있는 유전자는 세포 DNA로의 통합에 의해 종종 발생하는 조절의 제약을 받거나 이에 방해받지 않는다. 다른 구현예에서, 삽입된 이종 유전자의 존재는 세포 고유의 중요 영역의 재배열 또는 방해를 유도하지 않는다. 다른 구현예에서는, 안정한 형질 감염 과정에서, 에피솜 벡터의 사용이 염색체-통합 플라스미드의 사용보다 종종 더 높은 형질감염 효율을 초래한다(Belt, P.B.G.M., 등(1991) Efficient cDNA cloning by direct phenotypic correction of mutant human cell line(HPRT2) using Epstein-Barr virus-derived cDNA experssion vector. Nucleic Acids Res. 19, 4861-4866; Mazda, O., 등(1997) Extremely efficient gene transfection into lympho-hemotopoietic cell lines by Epstein-Barr virus-based vectors. J. Immunol. Methods 204, 143-151). 일 구현예에서, 본원에 개시되는 조성물 및 방법의 에피솜 발현 벡터는 DNA 분자를 세포에 전달하기 위해 이용되는 다양한 방법 중 어떤 것에 의해서라도 생체내, 생체외, 또는 시험관내에서 세포로 전달될 수 있다. 벡터는 또한 단독으로 또는 대상의 세포로의 전달을 증진시키는 약제학적 조성물의 형태로 전달될 수 있다.
일 구현예에서, 용어 "융합된"은 공유 결합에 의한 작동 가능한 연결을 의미한다. 일 구현예에서, 이 용어는 (핵산 서열 또는 이의 오픈 리딩 프레임의) 재조합 융합을 포함한다. 다른 구현예에서, 이 용어는 화학적 접합을 포함한다.
일 구현예에서, "형질전환"은 플라스미드 또는 다른 이종 DNA 분자를 채택하도록 박테리아 세포를 조작하는 것을 의미한다. 다른 구현예에서, "형질전환"은 플라스미드 또는 다른 이종 DNA 분자의 유전자를 발현하도록 박테리아 세포를 조작하는 것을 가리킨다. 각각의 가능성은, 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
다른 구현예에서, 접합은 유전 물질 및/또는 플라스미드를 박테리아 내로 도입하기 위해 사용된다. 접합을 위한 방법은 본 분야에 널리 공지되었으며, 예를 들어, Nikodinovic J. 등(A second generation snp-derived Escherichia coli-Streptomyces shuttle expression vector that is generally transferable by conjugation. Plasmid. 2006 Nov;56(3):223-7) 및 Auchtung JM 등(Regulation of a Bacillus subtilis mobile genetic element by intercellular signaling and the global DNA damage response. Proc Natl Acad Sci U S A. 2005 Aug 30;102(35):12554-9)에 기재되어 있다. 각각의 방법은 본원에 개시된 방법 및 조성물의 개별적인 구현예를 나타낸다.
일 구현예에서, 용어 "약독화(attenuation)"는 박테리아가 동물에서 질환을 일으키는 능력의 감소를 의미한다. 다시 말하면, 비록 약독화된 리스테리아가 배양액에서 성장 및 유지될 수 있다 하더라도, 약독화된 리스테리아 균주의 병리적 특징은 야생형 리스테리아에 비해 감소된다. 약독화된 리스테리아에 의한 Balb/c 마우스의 정맥내 접종을 일례로 사용하면, 접종된 동물의 50%가 생존하는 치사 용량(LD50)은 바람직하게는 야생형 리스테리아의 LD50보다 적어도 약 10 배, 더욱 바람직하게는 적어도 약 100 배, 더욱 바람직하게는 적어도 약 1,000 배, 한층 더 바람직하게는 적어도 약 10,000 배, 그리고 가장 바람직하게는 적어도 약 100,000 배만큼 증가한다. 따라서, 약독화된 리스테리아의 균주는, 투여되는 동물을 치사시키지 않는 것, 또는 투여되는 박테리아의 개수가 동일한 동물을 치사시키는 데 요구되는 야생형 비-약독화 박테리아의 개수보다 매우 많을 때에만 동물을 치사시키는 것이다. 약독화된 박테리아는 또한 이의 성장에 요구되는 영양분이 내부에 존재하지 않기 때문에, 일반적인 환경에서 복제될 수 없는 것을 의미하도록 해석되어야 한다. 따라서, 박테리아는 필요 영양소가 제공되는 조절된 환경에서의 복제로 제한된다. 따라서, 본 발명의 약독화된 균주는, 이들이 비조절된 복제가 가능하지 않다는 점에서 환경적으로 안전하다.
조성물
일 구현예에서, 본 발명의 조성물은 면역원성 조성물이다. 일 구현예에서, 본 발명의 조성물은, 일 구현예에서 항-혈관형성 특성을 갖는, 인터페론-감마의 강한 선천적 자극을 유도한다. 일 구현예에서, 본원에 개시되는 리스테리아는, 일 구현예에서 항-혈관형성 특성을 갖는, 인터페론-감마의 강한 선천적 자극을 유도한다(Dominiecki 등, Cancer Immunol Immunother. 2005 May; 54(5):477-88. Epub 2004 Oct 6, 그 전체가 본원에 참조로 포함됨; Beatty and Paterson, J Immunol. 2001 Feb 15; 166(4): 2276-82, 그 전체가 본원에 참조로 포함됨). 일 구현예에서, 리스테리아의 항-혈관형성 특성은 CD4+T 세포에 의해 매개된다(Beatty 및 Paterson, 2001). 다른 구현예에서, 리스테리아의 항-혈관형성 특성은 CD8+T 세포에 의해 매개된다. 다른 구현예에서, 리스테리아 백신접종의 결과로서 IFN-감마 분비는 NK 세포, NKT 세포, Th1 CD4+T 세포, TC1 CD8+T 세포, 또는 이들의 조합에 의해 매개된다.
다른 구현예에서, 본원에 개시되는 조성물의 투여는 하나 이상의 항-혈관형성 단백질 또는 인자의 생산을 유도한다. 일 구현예에서, 항-혈관형성 단백질은 IFN-감마이다. 다른 구현예에서, 항-혈관형성 단백질은 색소 상피세포-유래 인자(PEDF); 안지오스타틴; 엔도스타틴; fms-유사 티로신 키나아제(sFlt)-1; 또는 수용성 엔도글린(endoglin)(sEng)이다. 일 구현예에서, 본 발명의 리스테리아는 항-혈관형성 인자의 방출에 관여하고, 따라서, 일 구현예에서, 대상에 항원을 도입하기 위한 벡터로서의 역할에 더하여 치료제 역할을 갖는다. 각각의 리스테리아 균주 및 이의 유형은 본 발명의 개별적인 구현예를 나타낸다.
본원에 개시된 방법 및 조성물에 의해 유도되는 면역 반응은, 다른 구현예에서, T 세포 반응이다. 다른 구현예에서, 면역 반응은 T 세포 반응을 포함한다. 다른 구현예에서, 반응은 CD8+ T 세포 반응이다. 다른 구현예에서, 반응은 CD8+T 세포 반응을 포함한다. 각각의 가능성은 본원에 개시되는 개별적인 구현예를 나타낸다.
다른 구현예에서, 본원에 개시된 조성물의 투여는 항원-특이적 T 세포의 개수를 증가시킨다. 다른 구현예에서, 조성물의 투여는 T 세포 상에서 공동-자극 수용체를 활성화시킨다. 다른 구현예에서, 조성물의 투여는 기억 및/또는 주효 T 세포의 증식을 유도한다. 다른 구현예에서, 조성물의 투여는 T 세포의 증식을 증가시킨다.
본원 전체에 걸쳐 사용되는 용어 "조성물"및 "면역원성 조성물"은, 모두 동일한 의미와 품질을 갖는 것으로서 상호 교환 가능하다. 일 구현예에서, 각각의 성분의 동시 또는 순차적 투여를 위해 재조합 리스테리아 균주를 포함하고 추가로 항체를 포함하는 본원에 개시되는 면역원성 조성물은 또한 "병용 요법"으로 언급된다. 다른 구현예에서, 각각의 성분의 동시 또는 순차적 투여를 위해 재조합 리스테리아 균주를 포함하고 추가로 항체를 포함하는 본원에 개시되는 면역원성 조성물은 또한 "병용 요법"으로 언급된다. 병용 요법은 또한 부가적 성분, 항체, 치료제 등을 포함할 수 있다는 것이 당업자에게 이해될 것이다. "약제학적 조성물"이라는 용어는, 일부 구현예에서, 예를 들어, 필요로 하는 대상에 투여하기 위한 약제학적 용도에 적절한 조성물을 가리킨다.
본 발명의 조성물은, 대상에서 향상된 항-종양 T 세포 반응을 유발하기 위해, 대상에서 종양-매개의 면역억제를 저해하기 위해, 또는 대상의 비장 및 종양에서 T 주효 세포 대 조절 T 세포(Treg)의 비율을 증가시키기 위해, 또는 이들의 임의의 조합을 위해, 본 발명의 방법에서 사용될 수 있다.
다른 구현예에서, 본원에서 개시되는 리스테리아 균주를 포함하는 조성물은 보강제(adjuvant)를 추가로 포함한다. 일 구현예에서, 본 발명의 조성물은 보강제를 추가로 포함한다. 본 발명의 방법 및 조성물에 이용되는 보강제는, 다른 구현예에서, 과립구/대식세포 콜로니-자극 인자(GM-CSF) 단백질이다. 다른 구현예에서, 보강제는 GM-CSF 단백질을 포함한다. 다른 구현예에서, 보강제는 GM-CSF를 암호화하는 뉴클레오티드 분자이다. 다른 구현예에서, 보강제는 GM-CSF를 암호화하는 뉴클레오티드 분자를 포함한다. 다른 구현예에서, 보강제는 사포닌 QS21이다. 다른 구현예에서, 보강제는 사포닌 QS21을 포함한다. 다른 구현예에서, 보강제는 모노포스포릴 리피드 A이다. 다른 구현예에서, 보강제는 모노포스포릴 리피드 A를 포함한다. 다른 구현예에서, 보강제는 SBAS2이다. 다른 구현예에서, 보강제는 SBAS2을 포함한다. 다른 구현예에서, 보강제는 비메틸화 CpG-포함 올리고뉴클레오티드이다. 다른 구현예에서, 보강제는 비메틸화 CpG-포함 올리고뉴클레오티드를 포함한다. 다른 구현예에서, 보강제는 면역-자극 사이토카인이다. 다른 구현예에서, 보강제는 면역-자극 사이토카인을 포함한다. 다른 구현예에서, 보강제는 면역-자극 사이토카인을 암호화하는 뉴클레오티드 분자이다. 다른 구현예에서, 보강제는 면역-자극 사이토카인을 암호화하는 뉴클레오티드 분자를 포함한다. 다른 구현예에서, 보강제는 퀼 글리코시드이거나 이를 포함한다. 다른 구현예에서, 보강제는 박테리아 미토겐이거나 이를 포함한다. 다른 구현예에서, 보강제는 박테리아 독소이거나 이를 포함한다. 다른 구현예에서, 보강제는 당해 분야에 공지된 임의의 다른 보강제이거나 이를 포함한다. 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
일 구현예에서, 본원에 개시되는 면역학적 조성물은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는데, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다. 다른 구현예에서, 본원에 개시되는 면역원성 조성물은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는데, 상기 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다.
일 구현예에서, 본원에 개시되는 면역원성 조성물은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는데, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 상기 조성물은 항체 또는 이의 단편을 추가로 포함한다. 다른 구현예에서, 상기 항체 또는 이의 단편은 다클론 항체, 단클론 항체, Fab 단편, F(ab')2 단편, Fv 단편, 단일 사슬 항체, 또는 이의 임의의 조합을 포함한다.
다른 구현예에서, 본원에 개시되는 면역원성 조성물은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는데, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 상기 조성물은 항체 또는 이의 단편을 추가로 포함한다. 다른 구현예에서, 상기 항체 또는 이의 단편은 다클론 항체, 단클론 항체, Fab 단편, F(ab')2 단편, Fv 단편, 단일 사슬 항체, 또는 이의 임의의 조합을 포함한다.
일부 구현예에서, "항체"라는 용어는 본원에서 기술되는 바와 같이 원하는 표적과 특이적으로 상호 작용할 수 있는, 예를 들어, TNF 수용체 수퍼패밀리 구성원, 또는 T-세포 수용체 공동-자극 분자, 또는 공동-자극 분자에 결합하는 항원 제시 세포 수용체와 결합할 수 있는 무손상 분자뿐 아니라 이의 기능적 단편, 예를 들어 Fab, F(ab')2, 및 Fv와 같은, 본원에서 "항원 결합 단편"으로도 언급되는 것을 가리킨다.
일부 구현예에서, 항체 단편은 다음을 포함한다: (1) 무손상 경쇄 및 하나의 중쇄의 일부를 생성하도록 전체 항체의 효소 파파인 소화에 의해 생산될 수 있는, 항체 분자의 1가 항원-결합 단편을 포함하는 단편인 Fab; (2) 무손상 경쇄 및 중쇄의 일부를 생성하도록 전체 항체를 펩신 처리 후 환원시킴으로써 수득될 수 있는, 항체 분자의 단편인 Fab'; 항체 분자당 두 개의 Fab' 단편이 수득됨; (3) 전체 항체를 후속 환원 없이 효소 펩신으로 처리함으로써 수득될 수 있는 항체의 단편인 (Fab')2; F(ab')2는 두 개의 이황화 결합에 의해 유지되는 두 개의 Fab' 단편의 이량체임; (4) 두 개의 사슬로서 발현되는, 경쇄의 가변 영역과 중쇄의 가변 영역을 포함하는 유전자 조작된 단편인 Fv; 또는 (5) 유전적으로 융합된 단일 사슬 분자로서 적절한 폴리펩티드 링커에 의해 연결된, 경쇄의 가변 영역과 중쇄의 가변 영역을 포함하는 유전자 조작된 분자인 단일 사슬 항체("SCA"). 각각의 가능성은, 본 발명의 개별적인 구현예를 나타낸다.
이들 단편을 제조하는 방법은 본 기술분야에 공지되어 있다. (예를 들어, 본원에 참조로 도입되는 Harlow and Lane, Antibodies: A Laboratory Manual, Cold Spring Harbor Laboratory, New York, 1988 참조).
일부 구현예에서, 항체 단편은, 항체의 단백질 가수분해에 의해 또는 그 단편을 암호화하는 DNA의 대장균이나 포유류 세포(예를 들어, 중국 햄스터 난소 세포 배양 또는 기타 단백질 발현 시스템)에서의 발현에 의해 제조될 수 있다.
항체 단편은, 일부 구현예에서, 종래의 방법에 의해 전체 항체의 펩신 또는 파파인 소화에 의해 수득될 수 있다. 예를 들어, 항체 단편은, F(ab')2로 표시되는 5S 단편을 제공하도록 펩신에 의한 항체의 효소적 분해에 의해 생산될 수 있다. 이 단편은, 티올 환원제를 사용하여, 그리고 선택적으로 이황화 연결의 절단으로부터 생성되는 설프히드릴기에 대한 차단 그룹을 사용하여, 추가로 절단되어 3.5S Fab’일가 단편을 생산할 수 있다. 대안으로, 펩신을 사용한 효소적 절단은, 두 개의 일가 Fab’단편 및 Fc 단편을 직접 생산한다. 이들 방법은, 예를 들어, Goldenberg의 미국특허 제4,036,945호 및 제4,331,647호, 그리고 이에 포함되어 있는 문헌들에 개시되어 있으며, 이들 특허 문헌의 전문은 본원에 참고로 원용된다. 또한, Porter, R. R., Biochem. J., 73: 119-126, 1959를 참조한다. 항체를 절단하는 다른 방법, 예를 들어 일가 경쇄-중쇄 단편을 형성하기 위한 중쇄의 분리, 단편의 추가 절단, 또는 기타 효소적, 화학적, 또는 유전자적 기술 또한, 단편이 무손상 항체에 의해 인식되는 항원에 결합되는 한, 사용할 수 있다.
Fv 단편은 VH 및 VL 사슬의 결합을 포함한다. 이 결합은, Inbar 등, Proc. Nat'l Acad. Sci. USA 69:2659-62, 1972에 개시되어 있는 바와 같이, 비공유성일 수 있다. 대안으로, 가변 사슬은 분자간 이황화 결합에 의해 연결되거나, 글루타르알데히드 등의 화학 물질에 의해 교차-결합될 수 있다. 바람직하게, Fv 단편은 펩티드 링커에 의해 연결된 VH 및 VL 사슬을 포함한다. 이들 단일-사슬 항원 결합 단백질(sFv)은, 올리고뉴클레오티드에 의해 연결된 VH 및 VL 도메인을 암호화하는 DNA 서열을 포함하는 구조적 유전자를 구축함으로써 제조된다. 구조적 유전자는 발현 벡터 내로 삽입되며, 발현 벡터는 이어서 대장균 등의 숙주 세포 내로 도입된다. 재조합 숙주 세포는, 두 개의 V 도메인을 연결하는 링커 펩티드로 단일 폴리펩티드 사슬을 합성한다. sFv를 생산하는 방법은, 예를 들어, Whitlow and Filpula의 Methods, 2: 97-105, 1991; Bird 등, Science 242:423-426, 1988; Pack 등, Bio/Technology 11:1271-77, 1993; 및 Ladner 등의 미국 특허 제4,946,778호에 개시되어 있으며, 이는 전체가 본원에 참고로 원용된다.
항체 단편의 다른 형태는 단일 상보성-결정 영역(CDR)을 코딩하는 펩티드이다. CDR 펩티드("최소 인식 단위"는, 관심 항체의 CDR을 암호화하는 유전자를 구축함으로써 수득할 수 있다. 이러한 유전자는, 예를 들어, 항체-생산 세포의 RNA로부터 가변 영역을 합성하도록 폴리머라제 연쇄 반응을 사용함으로써 제조된다. 예를 들어, Larrick and Fry, Methods, 2: 106-10, 1991을 참조한다.
일부 구현예에서, 본원에서 기술되는 항체 또는 단편은, 항체의 "인간화 형태"를 포함할 수 있다. 일부 구현예에서, "항체의 인간화 형태"라는 용어는, 비-인간 면역글로불린으로부터 유래되는 최소 서열을 포함하는 면역글로불린, 면역글로불린 사슬 또는 이의 단편(예를 들어, Fv, Fab, Fab’F(ab')2 또는 항체의 다른 항원-결합 서브서열)의 키메라 분자인 비-인간(예를 들어, 쥣과) 항체를 가리킨다. 인간화 항체는, 수용자의 상보성 결정 영역(CDR)으로부터의 잔기가 원하는 특이성, 친화성, 능력을 갖는 마우스, 래트 또는 토끼와 같은 비-인간 종(공여자 항체)의 CDR로부터의 잔기로 교체되는 인간 면역글로불린(수용자 항체)을 포함한다. 일부 경우에, 인간 면역글로불린의 Fv 프레임워크 잔기는 대응하는 비-인간 잔기로 교체된다. 인간화 항체는, 또한, 수용자 항체에서도 발견되지 않으며 임포트된 CDR 또는 프레임워크 서열에서도 발견되지 않는 잔기를 포함할 수 있다. 일반적으로, 인간화 항체는, CDR 영역 모두 또는 실질적으로 모두가 비-인간 면역글로불린의 그것에 대응하고 FR 영역의 모두 또는 실질적으로 모두가 인간 면역글로불린 공통 서열의 그것인, 적어도 하나, 통상적으로는 두 개의 가변 도메인의 실질적으로 모두를 포함할 것이다. 인간화 항체는 또한 최적으로, 면역글로불린 불변 영역(Fc), 통상적으로는 인간 면역글로불린 불변 영역의 적어도 일부를 포함할 것이다[Jones 등의 Nature, 321:522-525 (1986); Riechmann 등의 Nature, 332:323-329 (1988); 및 Presta, Curr. Op. Struct. Biol., 2:593-596 (1992)].
비-인간 항체를 인간화하는 방법은 해당 기술분야에 공지되어 있다. 일반적으로, 인간화 항체는 비-인간 공급원으로부터 그것에 도입되는 하나 이상의 아미노산 잔기를 갖는다. 이들 비-인간 아미노산 잔기는 전형적으로 임포트 가변 도메인으로부터 취해지는 임포트 잔기로 종종 언급된다. 인간화는 본질적으로, 인간 항체의 대응하는 서열을 설치류 CDR 또는 CDR 서열로 치환함으로써, Winter 등의 방법에 따라 수행될 수 있다[Jones 등, Nature, 321:522-525 (1986); Riechmann 등, Nature 332:323-327 (1988); Verhoeyen 등, Science, 239:1534-1536 (1988)]. 따라서, 이러한 인간화 항체는 키메라 항체로(미국 특허 제4,816,567호), 여기에서는 무손상 인간 가변 도메인보다 실질적으로 더 적게 비-인간 종으로부터의 대응하는 서열로 치환된다. 사실상, 인간화 항체는 통상적으로 일부 CDR 잔기 및 가능하게는 일부 FR 잔기가 설치류 항체의 유사 부위로부터의 잔기로 치환된 인간 항체이다.
인간 항체는 또한, 파아지 디스플레이 라이브러리를 포함한 본 기술분야에 알려져 있는 다양한 기술을 사용하여 생산될 수 있다[Hoogenboom and Winter, J. Mol. Biol., 227:381 (1991); Marks 등, J. Mol. Biol., 222:581 (1991)]. Cole 등 및 Boerner 등의 기법은 또한, 인간 단클론 항체의 제조에 이용할 수 있다(Cole 등의 Monoclonal Antibodies and Cancer Therapy, Alan R. Liss, p. 77 (1985) 및 Boerner 등, J. Immunol., 147(1):86-95 (1991)]. 유사하게, 인간 항체는, 인간 면역글로불린 유전자 자리를 형질전환 동물, 예를 들어, 내인성 면역글로불린 유전자가 부분적으로 또는 완전히 비활성화된 마우스에 도입함으로써 제조될 수 있다. 접종시, 유전자 재배열, 조립, 및 항체 레퍼토리를 포함한 모든 면에서 인간에게서 보이는 것과 매우 닮은 인간 항체 생산이 관찰된다. 이러한 접근법은, 예를 들어, 미국특허 번호 제5,545,807호; 제5,545,806호; 제5,569,825호; 제5,625,126호; 제5,633,425호; 제5,661,016호, 및 다음의 과학 출판물에 개시되어 있다. Marks 등, Bio/Technology 10, 779-783 (1992); Lonberg 등, Nature 368 856-859 (1994); Morrison, Nature 368 812-13 (1994); Fishwild 등, Nature Biotechnology 14, 845-51 (1996); Neuberger, Nature Biotechnology 14, 826 (1996); Lonberg and Huszar, Intern. Rev. Immunol. 13 65-93 (1995).
일 구현예에서, 항체 또는 이의 기능적 단편은 T-세포 수용체 공동-자극 분자, 공동-자극 분자에 결합하는 항원 제시 세포 수용체 또는 TNF 수용체 수퍼패밀리의 구성원을 포함하는 항원 또는 이의 일부에 결합한다. 다른 구현예에서, 항원 또는 이의 일부는 CD28, ICOS를 포함하는 T-세포 수용체 공동-자극 분자를 포함한다. 다른 구현예에서, 항원 또는 이의 일부는 CD80 수용체, CD86 수용체, 또는 CD46 수용체를 포함하는 공동-자극 분자에 결합하는 항원 제시 세포 수용체를 포함한다. 다른 구현예에서, 항원 또는 이의 일부는 글루코코르티코이드-유도 TNF 수용체(GITR), OX40(CD134 수용체), 4-1BB(CD137 수용체) 또는 TNFR25를 포함하는 TNF 수용체 수퍼패밀리 구성원을 포함한다.
일 구현예에서, 항체 또는 기능적 단편은 T-세포 수용체 공동-자극 분자 결합 영역, 공동-자극 분자에 결합하는 항원 제시 세포 수용체 결합 영역, 또는 TNF 수용체 수퍼패밀리의 구성원 결합 영역을 포함한다. 다른 구현예에서, 본원에 개시되는 항체는 CD28 항체, ICOS 항체, 또는 지금까지 이름이 밝혀지지 않은 공동-자극 수용체에 대한 항체이다. 다른 구현예에서, 항체는 CD80 수용체 항체, CD86 수용체 항체, 또는 CD46 수용체 항체이다. 다른 구현예에서, 항체는 글루코코르티코이드-유도 TNF 수용체(GITR) 항체, OX40(CD134 수용체) 항체, 4-1BB(CD137 수용체) 항체 또는 TNFR25 항체를 포함하는 TNF 수용체 수퍼패밀리 구성원-결합 항체이다. 항체의 형태는 단클론, 다클론, 인간, 또는 비-인간 동물 종으로부터 유래된 인간화 항체일 수 있다. 항체는 공동-자극 수용체 결합 부위에 대한 효능제로서 기능하는 데 특이적인 하나 또는 두 항체 사슬의 가변 부분을 갖는 부분적 또는 완전한 것일 수 있다.
다른 구현예에서, 본원에 개시되는 항체는 항-OX40 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 항체는 항-GITR 항체 또는 이의 항원 결합 단편이다.
다른 구현예에서는, 대상에서 암 또는 감염성 질환을 치료하는 방법이 개시되는데, 이 방법은 주효 T 세포의 집단을 수득하고, 이 집단을 GITRL, GITRL의 활성 단편, GITRL을 포함하는 융합 단백질, GITRL의 활성 단편을 포함하는 융합 단백질, 효능제 소형 분자, 및 효능제 항-항체로 구성되는 그룹으로부터 선택되는 GITR 효능제로 치료하는 단계를 포함한다. 다른 구현예에서, 대상은 암에 걸려있다.
다른 구현예에서는, 재조합 리스테리아 균주 및, GITRL, GITRL의 활성 단편, GITRL을 포함하는 융합 단백질, GITRL의 활성 단편을 포함하는 융합 단백질, 효능제 소형 분자, 및 효능제 항-항체로 구성되는 그룹으로부터 선택되는 GITR 효능제를 포함하는 병용 요법이 개시되는데, 여기에서 상기 병용 요법은 종양 또는 암을 갖는 대상을 치료하는 데 있어서의 사용을 위한 것이다.
일 구현예에서, 본 개시는 항-CD134 항체, 및 항-CD134의 유도체를 포함하는, 인간 CD134에 결합하는 분리된 결합 분자를 제공한다.
본 개시의 다른 구현예에서는 인간 CD134에 결합하는 결합 분자를 제공하는데, 여기에서 결합 분자는 인간 CD134(OX40 리간드(OX40L)를 방해하지 않고 상기 결합 분자는 인간 CD134 발현 T-주효 세포에서 인간 OX40L의 면역자극 및/또는 증식 반응을 저해하지 않는다.
다른 구현예에서, 본 개시는 인간 CD134에 결합하는 결합 분자를 제공하는데, 여기에서 인간 CD134 발현 T-세포에서 OX40L의 CD134 결합에 대한 효과는 약 70% 이하, 또는 약 60%, 또는 약 50%, 또는 약 40%, 또는 약 30%, 또는 약 20%, 또는 약 10% 이하 감소하고, 상기 결합 분자는 인간 CD134 발현 T-주효 세포에서 인간 OX40L의 면역자극 및/또는 증식 반응을 증진시킨다.
다른 구현예에서, 본 개시는 인간 CD134에 결합하는 결합 분자를 제공하는데, 여기에서 결합 분자는 인간 CD134(OX40 리간드(OX40L)를 방해하지 않고 상기 결합 분자는 인간 CD134 발현 T-주효 세포에서 인간 OX40L의 면역자극 및/또는 증식 반응을 증진시킨다.
일 구현예에서, 본원에 개시된 질환은 암 또는 종양이다. 일 구현예에서, 본 발명의 방법에 의해 치료되는 암은 유방암이다. 다른 구현예에서, 암은 자궁 경부암이다. 다른 구현예에서, 암은 Her2 함유 암이다. 다른 구현예에서, 암은 흑색종이다. 다른 구현예에서, 암은 췌장암이다. 다른 구현예에서, 암은 난소암이다. 다른 구현예에서, 암은 위암이다. 다른 구현예에서, 암은 췌장의 암종 병변이다. 다른 구현예에서, 암은 폐 선암이다. 다른 구현예에서, 암은 폐 선암이다. 다른 구현예에서, 암은 다형성 교아종이다. 다른 구현예에서, 암은 대장 선암이다. 다른 구현예에서, 암은 폐 편평상피 선암이다. 다른 구현예에서, 암은 위 선암이다. 다른 구현예에서, 암은 난소 표면 상피 종양(예를 들어, 이의 양성, 증식성 또는 악성 변종)이다. 다른 구현예에서, 암은 구강 편평 세포 암종이다. 다른 구현예에서, 암은 비소세포 폐암종이다. 다른 구현예에서, 암은 자궁내막 암종이다. 다른 구현예에서, 암은 방광 암이다. 다른 구현예에서, 암은 두경부 암이다. 다른 구현예에서, 암은 전립선 암종이다. 다른 구현예에서, 암은 구강인두암이다. 다른 구현예에서, 암은 폐암이다. 다른 구현예에서, 암은 항문암이다. 다른 구현예에서, 암은 대장암이다. 다른 구현예에서, 암은 식도암이다. 다른 실시예에서, 암은 중피종이다. .
일 구현예에서, 본원에 개시되는 이종 항원은 HPV-E7이다. 다른 구현예에서, 항원은 HPV-E6이다. 다른 구현예에서, HPV-E7는 HPV 균주 16 유래이다. 다른 구현예에서, HPV-E7는 HPV 균주 18 유래이다. 다른 구현예에서, HPV-E6은 HPV 균주 16 유래이다. 다른 구현예에서, HPV-E7는 HPV 균주 18 유래이다. 다른 구현예에서, 본원에 개시되는 이종 항원의 단편은 또한 본 발명에 포함된다.
다른 구현예에서, 항원은 Her-2/neu이다. 다른 구현예에서, 항원은 NY-ESO-1이다. 다른 구현예에서, 항원은 텔로머라제(TERT)이다. 다른 구현예에서, 항원은 SCCE이다. 다른 구현예에서, 항원은 CEA이다. 다른 구현예에서, 항원은 LMP-1이다. 다른 구현예에서, 항원은 p53이다. 다른 구현예에서, 항원은 탄산 탈수효소 IX(CAIX)이다. 다른 구현예에서, 항원은 PSMA이다. 다른 구현예에서, 항원은 전립선 줄기 세포 항원(PSCA)이다. 다른 구현예에서, 항원은 HMW-MAA이다. 다른 구현예에서, 항원은 WT-1이다. 다른 구현예에서, 항원은 HIV-1 Gag이다. 다른 구현예에서, 항원은 단백질분해효소 3이다. 다른 구현예에서, 항원은 티로시나제 관련 단백질 2이다. 다른 구현예에서, 항원은 PSA(전립선-특이적 항원)이다. 다른 구현예에서, 항원은 HPV-E7, HPV-E6, Her-2, NY-ESO-1, 텔로머라아제 (TERT), SCCE, HMW-MAA, EGFR-III, 서바이빈, 바큘로바이러스 세포자멸 억제자 반복서열-함유 5(BIRC5), WT-1, HIV-1 Gag, CEA, LMP-1, p53, PSMA, PSCA, 단백질 분해효소 3, 티로시나제 관련 단백질 2, Muc1, PSA (전립선-특이적 항원), 또는 이들의 조합으로부터 선택된다.
다른 구현예에서, "면역원성 단편"은 대상에 단독으로 또는 본원에 개시된 백신 조성물로 투여할 때 면역 반응을 유발하는 것이다. 이러한 단편은, 또 다른 구현예에서, 체액성 면역 반응, 및/또는 입양 면역 반응 중 어느 하나를 유발하기 위해 필요한 에피토프를 포함하고 있다.
일 구현예에서, 본원에 개시되는 조성물은 항체 또는 이의 기능적 단편을 포함한다. 다른 구현예에서, 조성물은 적어도 하나의 항체 또는 이의 기능적 단편을 포함한다. 다른 구현예에서, 조성물은 2 항체, 3 항체, 4 항체, 또는 4 개 보다 많은 항체를 포함할 수 있다. 다른 구현예에서, 본 발명의 조성물은 Lm 균주 및 항체 또는 이의 기능적 단편을 포함한다. 다른 구현예에서, 본원에 개시되는 조성물은 Lm 균주 및 적어도 하나의 항체 또는 이의 기능적 단편을 포함한다. 다른 구현예에서, 본원에 개시되는 조성물은 Lm 균주 및 2 항체, 3 항체, 4 항체, 또는 4 개 보다 많은 항체를 포함한다. 다른 구현예에서, 본원에 개시되는 조성물은 항체 또는 이의 기능적 단편을 포함한다. 동일하거나 상이한 조성물 내에 존재하는 상이한 항원은 동일한 형태일 필요가 없으며, 예를 들어, 하나의 항체가 단클론 항체일 수 있고 다른 항체는 FAb 단편일 수 있다.
일 구현예에서, 본원에 개시되는 조성물은 GITR 또는 이의 부분에 특이적으로 결합하는 항체 또는 이의 기능적 단편을 포함한다. 일 구현예에서, 본원에 개시되는 조성물은 OX40 또는 이의 부분에 특이적으로 결합하는 항체 또는 이의 기능적 단편을 포함한다. 다른 구현예에서, 조성물은 GITR 또는 이의 부분에 특이적으로 결합하는 항체, 및 OX40에 특이적으로 결합하는 항체를 포함할 수 있다. 다른 구현예에서, 본 발명의 조성물은 Lm 균주 및 GITR에 특이적으로 결합하는 항체 또는 이의 기능적 단편을 포함한다. 다른 구현예에서, 본 발명의 조성물은 Lm 균주 및 OX40에 특이적으로 결합하는 항체 또는 이의 기능적 단편을 포함한다. 다른 구현예에서, 본 발명의 조성물은 Lm 균주 및 GITR 또는 이의 부분에 특이적으로 결합하는 항체, 및 OX40 또는 이의 부분에 특이적으로 결합하는 항체를 포함한다. 다른 구현예에서, 본 발명의 조성물은 GITR에 특이적으로 결합하는 항체 또는 이의 기능적 단편을 포함하는데, 여기에서 이 조성물은 본원에 개시되는 리스테리아 균주를 포함하지 않는다. 다른 구현예에서, 본 발명의 조성물은 OX40에 특이적으로 결합하는 항체 또는 이의 기능적 단편을 포함하는데, 여기에서 이 조성물은 본원에 개시되는 리스테리아 균주를 포함하지 않는다. 다른 구현예에서, 본 발명의 조성물은 GITR에 특이적으로 결합하는 항체 또는 이의 기능적 단편, 및 GITR에 특이적으로 결합하는 항체를 포함하는데, 여기에서 이 조성물은 본원에 개시되는 리스테리아 균주를 포함하지 않는다. 동일하거나 상이한 조성물 내에 존재하는 상이한 항원은 동일한 형태일 필요가 없으며, 예를 들어, 하나의 항체가 단클론 항체일 수 있고 다른 항체는 FAb 단편일 수 있다. 각각의 가능성은 본 발명의 상이한 구현예를 나타낸다.
용어 "항체 기능적 단편"은 본 발명에 의해 의도되는 생물학적 효과를 야기하도록 항원에 특이적으로 결합할 수 있는 온전한 항체의 부분을 의미한다. 항체 단편의 예는 Fab, Fab', F(ab')2, 및 Fv 단편, 선형 항체, scFv 항체, 및 항체 단편들로부터 형성된 다중특이적 항체를 포함하나, 이에 제한되지 않는다.
본원에서 사용되는 "항체 중쇄"는 이들의 천연적으로 존재하는 형태에서 모든 항체 분자에 존재하는 폴리펩티드 사슬의 2 개 유형 중 더 큰 것을 말한다.
본원에서 사용되는 "항체 경쇄"는 이들의 천연적으로 존재하는 형태에서 모든 항체 분자에 존재하는 폴리펩티드 사슬의 2 개 유형 중 더 작은 것을 말하는데, κ 및 λ 경쇄는 두 개의 주요 항체 경쇄 동형을 말한다.
용어 "합성 항체"가, 예를 들어 본원에 기술되는 박테리오파아지에 의해 발현되는 항체와 같이, 재조합 DNA 기법을 사용하여 생성된 항체를 포함할 수 있음을 당업자는 이해할 것이다. 이 용어는 또한, DNA 분자가 항체 단백질, 또는 항체를 지정하는 아미노산 서열을 발현하고 항체를 암호화하는 DNA 분자의 합성에 의해 생성되는 항체를 의미하도록 해석되어야 하는데, 여기에서 DNA 또는 아미노산 서열은 해당 분야에 잘 알려져 있고 이용 가능한 합성 DNA 또는 아미노산 서열 기법을 사용하여 얻어진다.
일 구현예에서, 항체 또는 이의 기능적 단편은 항원 결합 영역을 포함한다. 일 구현예에서, 항원 결합 영역은 항체 또는 이의 항원-결합 도메인이다. 일 구현예에서, 이의 항원-결합 도메인은 Fab 또는 scFv이다.
항체와 관련하여 용어 "결합하다" 또는 "특이적으로 결합하다"는 특이적 항원을 인식하지만 샘플 내의 다른 분자는 실질적으로 인식하거나 결합하지 않는 항체를 포괄한다는 것이 당업자에 의해 인정될 것이다. 예를 들어, 한 종으로부터의 항원에 특이적으로 결합하는 항체는 또한 하나 이상의 종으로부터의 항원에 결합할 수 있으나, 이러한 교차-종 반응성은 그 자체가 특이성으로서 항체의 분류를 바꾸지 않는다. 다른 예에서, 항원에 특이적으로 결합하는 항체는 또한 항원의 상이한 대립형질 형태에 결합할 수 있다. 그러나, 이러한 교차 반응성은 그 자체가 특이성으로서 항체의 분류를 바꾸지 않는다. 일부 예에서, 용어 "특이적 결합" 또는 "특이적으로 결합"은 제2 화학종과 항체, 단백질 또는 펩티드의 상호작용에 대하여 사용될 수 있으며, 이는 상호작용이 화학종의 특정 구조(예를 들어, 항원 결정기 또는 에피토프)의 존재에 의존함을 의미하는데; 예를 들어, 항체는 특이적 아미노산 서열보다는 특이적 단백질 구조를 인식하고 결합한다.
일 구현예에서, 본 발명의 조성물은 재조합 리스테리아 모노사이토제네스 (Lm) 균주를 포함한다. 다른 구현예에서, 본원에 개시되는 조성물은 본원에 기술하는 항체 또는 이의 기능적 단편을 포함한다.
일 구현예에서, 면역원성 조성물은 본원에 개시되는 항체 또는 이의 기능적 단편, 및 본원에 개시되는 재조합 약독화 리스테리아를 포함한다. 다른 구현예에서, 본원에 개시되는 면역원성 조성물의 각 성분은 본원에 개시되는 면역원성 조성물의 다른 성분 전, 이와 동시 또는 후에 투여된다. 일 구현예에서, 동시에 투여될 때에도 Lm 조성물 및 항체 또는 이의 기능적 단편은 두 개의 별개 조성물로서 투여될 수 있다. 대안적으로, 다른 구현예에서, Lm 조성물은 항체 또는 이의 기능적 단편을 포함할 수 있다.
다른 구현예에서, 본원에 개시되는 조성물은 본 분야의 당업자에게 공지된 임의의 방법, 예를 들어 비경구, 암 주위(paracancerally), 경점막, 경피, 근육내, 정맥내, 피부내, 피하, 복강내, 심실내, 두개내, 질내 또는 종양내로 대상에 투여된다.
다른 구현예에서, 조성물은 경구 투여되고, 따라서 경구 투여에 적절한 형태로, 즉, 고체 또는 액체 제제로 제형화된다. 적절한 고체 경구 제형은 정제, 캡슐, 알약, 과립, 펠릿 등을 포함한다. 적절한 액체 경구 제형은, 용액, 현탁액, 분산제, 유제, 오일 등을 포함한다. 본 발명의 다른 구현예에서, 활성 성분은 캡슐로 제형화된다. 이 구현예에 따르면, 본 발명의 조성물은, 활성 화합물과 불활성 담체 또는 희석액에 더하여, 경질 젤라틴 캡슐을 포함한다.
다른 구현예에서, 조성물은 액체 제제의 정맥내, 동맥내, 또는 근육내 주사에 의해 투여된다. 적절한 액체 제형은 용액, 현탁액, 분산제, 유제, 오일 등을 포함한다. 일 구현예에서, 약제학적 조성물은 정맥내 투여되며, 따라서 정맥내 투여에 적절한 형태로 제형화된다. 다른 구현예에서, 약제학적 조성물은 동맥내 투여되고, 따라서 동맥내 투여에 적절한 형태로 제형화된다. 다른 구현예에서, 약제학적 조성물은 근육내 투여되고, 따라서 근육내 투여에 적절한 형태로 제형화된다.
일부 구현예에서, 항체 또는 이의 기능적 단편이 재조합 Lm 균주를 포함하는 조성물과 별도로 투여될 때, 항체는 정맥내, 피하 또는 종양 또는 종양 베드 내로 직접 투여될 수 있다. 일 구현예에서, 항체를 포함하는 조성물은 종양이 수술로 제거된 후 남아있는 공간, 예를 들어 전립선 종양의 제거 후 전립선 내의 공간에 주입된다.
일 구현예에서, 용어 "면역원성 조성물"은 본원에 개시되는 재조합 리스테리아, 및 보강제, 및 항체 또는 이의 기능적 단편, 또는 이들의 임의의 조합을 포함할 수 있다. 다른 구현예에서, 면역원성 조성물은 본원에 개시되는 재조합 리스테리아를 포함한다. 다른 구현예에서, 면역원성 조성물은 본 기술분야에 알려져 있거나 본원에 개시되는 바와 같은 보강제를 포함한다. 이러한 조성물의 투여는 본원에서 추가로 개시되는 바와 같이, 면역 반응을 증강시키거나, 조절 T 세포에 대한 T 주효 세포 비율을 증가시키거나 항-종양 면역 반응을 유발시키는 것이 또한 이해될 것이다.
일 구현예에서, 본 발명은 기술된 리스테리아 균주를 포함하고, 추가로 항체 또는 이의 기능적 단편을 포함하는 조성물을 투여하는 것을 포함하는 사용 방법을 제공한다. 다른 구현예에서, 사용 방법은 동일하거나 상이한 조성물에 존재할 수 있고, 리스테리아와 동일한 조성물 또는 별개의 조성물에 존재할 수 있는, 본원에 개시되는 하나 보다 많은 항체를 투여하는 것을 포함한다.
일 구현예에서, 용어 "약제학적 조성물"은 약제학적으로 허용 가능한 담체 또는 희석제와 함께, 치료적으로 유효한 양의 리스테리아 균주를 포함하는 성분 또는 활성 성분, 및 적어도 하나의 항체 또는 이의 기능적 단편을 포함한다. "치료적으로 유효한 양"이라는 용어는, 주어진 조건 및 투여 요법에서 치료 효과를 제공하는 양을 가리킨다는 점이 이해될 것이다.
당업자라면, "투여"라는 용어가 대상을 본 발명의 조성물과 접촉시키는 것을 포함한다는 점을 이해할 것이다. 일 구현예에서, 투여는 시험관내, 즉, 시험관에서, 또는 생체내, 즉, 생물, 예를 들어, 인간의 세포 또는 조직에서 달성될 수 있다. 일 구현예에서, 본 발명은 본 발명의 리스테리아 균주 및 이의 조성물을 대상에 투여하는 것을 포함한다.
본원에서 사용된 바와 같은 용어 "약"은 정량적 측면에서 ±5%, 또는 다른 구현예에서 ±10%, 또는 다른 구현예에서 ±15%, 또는 다른 구현예에서 ±20%를 의미한다. "대상"이라는 용어는, 병태 또는 그 후유증에 대한 요법을 필요로 하거나 이에 민감한 성인 인간 또는 인간 어린이, 십대 또는 청소년을 포함하는 포유 동물을 포함할 수 있으며, 또한 개, 고양이, 돼지, 소, 양, 염소, 말, 래트, 및 마우스 같은 비-인간 포유류를 포함할 수도 있다. 또한 이 용어는 가축을 포괄할 수도 있다는 것이 인정될 것이다. 용어 "대상"은 모든 면에서 정상적인 개인을 배제하지 않는다.
본원에 개시되는 면역원성 조성물의 투여 후에, 본원에 개시되는 방법은 말초 림프 장기에서 T 주효 세포의 팽창을 유도하여 종양 부위에서 T 주효 세포의 존재를 증진시킨다. 다른 구현예에서, 본원에 개시되는 방법은 말초 림프 장기에서 T 주효 세포의 팽창을 유도하여 말초에서 T 주효 세포의 존재를 증진시킨다. 이러한 T 주효 세포의 팽창은, Treg의 개수에 영향을 주지 않고 말초 및 종양 부위에서 T 주효 세포 대 조절 T 세포의 증가된 비율을 유도한다. 당업자라면, 말초 림프 장기가 비장, 페이어스 패치, 림프절, 아데노이드 등을 포함하지만, 이에 한정되지 않음을 인정할 것이다. 일 구현예에서, T 주효 세포 대 조절 T 세포의 증가된 비율은, Treg의 개수에 영향을 주지 않고 말초 부분에서 발생한다. 또 다른 구현예에서, T 주효 세포 대 조절 T 세포의 증가된 비율은 말초, 림프 장기, 및 종양 부위에서, 이들 부위의 Treg의 개수에 영향을 주지 않고 발생한다. 또 다른 구현예에서, T 주효 세포의 증가된 비율은 Treg의 빈도를 저하시키지만, 이들 부위에서의 Treg의 총 개수는 감소시키지 않는다.
병용 요법 및 이의 사용 방법
일 구현예에서는, 대상에서 증진된 항-종양 T 세포 반응을 유발하는 방법이 제공되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 여기에서 상기 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 항체는 효능제 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 항체는 항-TNF 수용체 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 항체는 항-OX40 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 항체는 항-GITR 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 상기 방법은 부가적 항체를 투여하는 것을 추가로 포함하는데, 이는 상기 재조합 리스테리아 균주를 포함하는 조성물에 포함될 수 있거나 별개의 조성물에 포함될 수 있다.
다른 구현예에서는, 대상에서 증진된 항-종양 T 세포 반응을 유발하는 방법이 개시되는데, 이 방법은 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 대상에 투여하는 단계를 포함하며, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함하는데, 여기에서 상기 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함한다. 다른 구현예에서, 항체는 효능제 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 항체는 항-TNF 수용체 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 항체는 항-OX40 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 항체는 항-GITR 항체 또는 이의 항원 결합 단편이다. 다른 구현예에서, 상기 방법은 부가적 항체를 투여하는 것을 추가로 포함하는데, 이는 상기 재조합 리스테리아 균주를 포함하는 조성물에 포함될 수 있거나 별개의 조성물에 포함될 수 있다.
일 구현예에서, 본원에 기술되는 리스테리아 균주를 포함하는 임의의 조성물이 본원에 개시되는 방법에 사용될 수 있다. 일 구현예에서, 리스테리아 균주 및 항체 또는 이의 단편, 예를 들어, 본원에 기술되는 TNF 수용체 수퍼패밀리 구성원에 결합하는 항체, 또는 T-세포 수용체 공동-자극 분자에 결합하는 항체 또는 공동-자극 분자에 결합하는 항원 제시 세포 수용체에 결합하는 항체를 포함하는 임의의 조성물이 본 발명의 방법에 사용될 수 있다. 일 구현예에서, 본원에 기술되는 항체 또는 이의 기능적 단편을 포함하는 임의의 조성물이 본원에 개시되는 방법에 사용될 수 있다. 리스테리아 균주를 항체 없이 또는 이와 함께 포함하는 조성물은 위에 구체적으로 기술된다. 항체를 갖는 조성물 또한 위에 구체적으로 기술되어 있다. 일부 구현예에서, 본 발명의 방법에서 항체 또는 이의 단편, 예를 들어 TNF 수용체 수퍼패밀리 구성원에 결합하는 항체, 또는 T-세포 수용체 공동-자극 분자에 결합하는 항체 또는 공동-자극 분자에 결합하는 항원 제시 세포 수용체에 결합하는 항체를 포함하는 조성물은 리스테리아 균주를 포함하는 조성물의 투여 전, 이와 동시 또는 후에 투여될 수 있다.
일 구현예에서, 본원에 개시되는 조성물의 반복 투여(투약)는 종양 퇴화를 달성하도록 첫 번째 치료 과정 직후 또는 수 일, 수 주 또는 수 개월의 기간 후 수행될 수 있다. 다른 구현예에서, 반복 투약은 종양 성장의 억제를 달성하도록 첫 번째 치료 과정 직후 또는 수 일, 수 주 또는 수 개월의 기간 후 수행될 수 있다. 평가는 이미징 기법, 혈청 종양 마커 분석, 생검, 또는 종양 관련 증상의 존재, 부재 또는 경감 같은 진단 방법을 포함하여, 본 기술분야에 공지된 임의의 기법에 의해 결정될 수 있다.
일 구현예에서는, 종양의 회피 돌연변이를 방지하면서, 이종 항원-발현 종양을 예방하고, 치료하고, 이에 대하여 백신접종하고 이종 항원의 서브-우성 에피토프에 대한 면역 반응을 유도하는 조성물 및 방법이 본원에 개시된다.
일 구현예에서, 이종 항원-발현 종양을 예방하고, 치료하고, 이에 대하여 백신접종하기 위한 방법 및 조성물은 절단된 리스테리올리신(tLLO) 단백질의 사용을 포함한다. 다른 구현예에서, 본원에 개시되는 방법 및 조성물은 tLLO를 과발현하는 재조합 리스테리아를 포함한다. 다른 구현예에서, tLLO는 리스테리아 내의 플라스미드로부터 발현된다.
다른 구현예에서는, 대상에서 종양 성장 또는 암을 예방 또는 치료하는 방법이 본원에 개시되는데, 이 방법은 본원에 기술되는 항체 또는 이의 기능적 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다. 다른 구현예에서는, 대상에서 종양 성장 또는 암을 예방 또는 치료하는 방법이 본원에 개시되는데, 이 방법은 본원에 기술되는 항체 또는 이의 기능적 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다.
일 구현예에서, 용어 "치료하는 것"은 질환을 치유하는 것을 의미한다. 다른 구현예에서, "치료하는 것"은 질환을 예방하는 것을 의미한다. 다른 구현예에서, "치료하는 것"은 질환의 발생을 감소시키는 것을 의미한다. 다른 구현예에서, "치료하는 것"은 질환의 증상을 개선시키는 것을 의미한다. 다른 구현예에서, "치료하는 것"은 환자의 무진행 생존 또는 전체 생존을 증가시키는 것을 의미한다. 다른 구현예에서, "치료하는 것"은 질환의 진행을 안정화하는 것을 의미한다. 다른 구현예에서, "치료하는 것"은 차도를 유도하는 것을 의미한다. 다른 구현예에서, "치료하는 것"은 질환의 진행을 늦추는 것을 의미한다. 용어 "감소시키는 것", "억제하는 것" 및 "저해하는 것"은 다른 구현예에서 줄이거나 저하시키는 것을 의미한다.
일 구현예에서는, 본원에 개시되는 면역원성 조성물을 투여하는 단계를 포함하는, 대상의 비장 및 종양 미세환경에서 T 주효 세포 대 조절 T 세포(Treg)의 비율을 증가시키는 방법이 본원에 개시된다. 다른 구현예에서, 대상의 비장 및 종양 미세환경에서 T 주효 세포 대 조절 T 세포(Treg)의 비율을 증가시키는 것은 대상에서 더욱 완전한 항-종양 반응을 허용한다.
다른 구현예에서, T 주효 세포는 CD4+FoxP3- T 세포를 포함한다. 다른 구현예에서, T 주효 세포는 CD4+FoxP3- T 세포이다. 다른 구현예에서, T 주효 세포는 CD4+FoxP3- T 세포 및 CD8+ T 세포를 포함한다. 다른 구현예에서, T 주효 세포는 CD4+FoxP3- T 세포 및 CD8+ T 세포이다. 다른 구현예에서, 조절 T 세포는 CD4+FoxP3+ T 세포이다.
일 구현예에서, 본 발명은 본원에 개시되는 면역원성 조성물을 대상에 투여하는 단계를 포함하는, 종양 또는 암을 치료, 이에 대한 보호, 및 이에 대한 면역 반응을 유도하는 방법을 제공한다.
일 구현예에서, 본 발명은 본원에 개시되는 면역원성 조성물 균주인, LLO 단백질의 N-말단 단편 및 종양-관련 항원을 포함하는 재조합 폴리펩티드를 포함하는 재조합 리스테리아 균주를 대상에 투여하고, 이에 의해 재조합 리스테리아 균주가 종양-관련 항원에 대한 면역 반응을 유도하여, 인간 대상에서 종양 또는 암을 치료하는 단계를 포함하는, 인간 대상에서 종양 또는 암을 예방 또는 치료하는 방법을 제공한다. 다른 구현예에서, 면역 반응은 T-세포 반응이다. 다른 구현예에서, T-세포 반응은 CD4+FoxP3- T 세포 반응이다. 다른 구현예에서, T-세포 반응은 CD8+ T 세포 반응이다. 다른 구현예에서, T-세포 반응은 CD4+FoxP3- 및 CD8+ T 세포 반응이다. 다른 구현예에서, 본 발명은 본원에 개시되는 면역원성 조성물을 대상에 투여하는 단계를 포함하는, 종양 또는 암에 대하여 대상을 보호하는 방법을 제공한다. 다른 구현예에서, 본 발명은 본원에 개시되는 면역원성 조성물을 대상에 투여하는 단계를 포함하는, 대상에서 종양의 퇴행을 유도하는 방법을 제공한다. 다른 구현예에서는, 본원에 개시되는 면역원성 조성물을 대상에 투여하는 단계를 포함하는, 종양 또는 암의 발생 또는 재발을 감소시키는 방법이 본원에 개시된다. 다른 구현예에서는, 본원에 개시되는 면역원성 조성물을 대상에 투여하는 단계를 포함하는, 대상에서 종양의 형성을 억제하는 방법이 본원에 개시된다. 다른 구현예에서는, 본원에 개시되는 면역원성 조성물을 대상에 투여하는 단계를 포함하는, 대상에서 암의 퇴행을 유도하는 방법이 본원에 개시된다. 일 구현예에서, 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하는 핵산 분자는 리스테리아 게놈으로 통합된다. 다른 구현예에서, 핵산은 재조합 리스테리아 백신 균주 내의 플라스미드에 있다.
일 구현예에서, 이 방법은 부가적 요법과 함께 재조합 리스테리아를 공동-투여하는 단계를 포함한다. 다른 구현예에서, 부가적 요법은 수술, 화학 요법, 면역 요법, 방사선 요법, 항체 기반 면역 요법, 또는 이들의 조합이다. 다른 구현예에서, 부가적 요법은 재조합 리스테리아의 투여에 선행한다. 다른 구현예에서, 부가적 요법은 재조합 리스테리아의 투여에 뒤따른다. 다른 구현예에서, 부가적 요법은 항체 요법이다. 다른 구현예에서, 재조합 리스테리아는 T-주효 세포 대 조절 T 세포 비율을 증가시키고 더 강력한 항-종양 면역 반응을 생성하기 위해 증가하는 용량으로 투여된다. 항-종양 면역 반응은 IFN-γ, TNF-α를 포함하지만, 이에 한정되지 않는 사이토카인, 및 세포 면역 반응을 강화하는 것으로 당해 기술 분야에서 공지된 다른 사이토카인을 종양이 있는 대상에 제공함으로써 더욱 강화될 수 있다는 것이 당업자에 의해 인정될 것이며, 이들 중 일부는 본원에 참고로 인용된 미국 특허 번호 제6,991,785호에서 찾을 수 있다.
일 구현예에서, 본원에 개시되는 방법은 상기 대상에서 항-종양 면역 반응을 증진시키는 항체 또는 이의 기능적 단편과 함께 본원에 개시되는 면역원성 조성물을 공동-투여하는 단계를 추가로 포함한다.
일 구현예에서, 본원에 개시되는 방법은 인돌아민 2,3-디옥시게나아제(IDO) 경로 저해제와 함께 본원에 개시되는 면역원성 조성물을 공동-투여하는 단계를 추가로 포함한다. 본 발명에서 사용하기 위한 IDO 경로 저해제는 1-메틸트립토판(1MT), 1- 메틸트립토판(1MT), 네크로스타틴-1, 피리독살 이소니코티노일 히드라존, 엡셀렌, 5-메틸인돌-3-카르복스알데히드, CAY10581, 항-IDO 항체 또는 소분자 IDO 저해제를 포함하지만, 이에 제한되지 않는, 본 분야에 알려진 임의의 IDO 경로 저해제를 포함한다. 다른 구현예에서, 본원에 개시되는 조성물 및 방법은 또한 화학치료 또는 방사선치료 요법과 함께, 그 전 또는 후에 사용된다. 다른 구현예에서, IDO 저해는 화학요법제의 효능을 증진시킨다.
다른 구현예에서는, 암으로 고통받거나 종양을 갖는 대상의 생존을 증가시키는 방법이 본원에 개시되는데, 이 방법은 본원에 기술되는 항체 또는 이의 기능적 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다.
다른 구현예에서는, 암으로 고통받거나 종양을 갖는 대상에서 항원-특이적 T-세포를 증가시키는 방법이 본원에 개시되는데, 이 방법은 본원에 기술되는 항체 또는 이의 기능적 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함한다. 다른 구현예에서는, 암으로 고통받거나 종양을 갖는 대상에서 T 세포를 증가시키는 방법이 본원에 개시되는데, 이 방법은 본원에 기술되는 항체 또는 이의 기능적 단편, 및 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물을 대상에 투여하는 단계를 포함하며, 핵산 분자는 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 암호화하는 제1 오픈 리딩 프레임을 포함한다.
다른 구현예에서, 본 발명의 방법은 본원에 개시되는 항체 또는 이의 기능적 단편 또는 재조합 리스테리아 균주로 대상을 부스팅하는 단계를 추가로 포함한다. 다른 구현예에서, 부스터 접종에 사용되는 재조합 리스테리아 균주는 초기 "프라이밍" 접종에 사용되는 균주와 동일하다. 다른 구현예에서, 부스터 균주는 프라이밍 균주와 상이하다. 다른 구현예에서, 부스터 접종에 사용되는 항체는 초기 "프라이밍" 접종에 사용되는 항체와 동일한 항원에 결합한다. 다른 구현예에서, 부스터 항체는 프라이밍 항체와 상이하다. 다른 구현예에서, 동일한 용량이 프라이밍 및 부스팅 접종에 사용된다. 다른 구현예에서, 더 큰 용량이 부스터에 사용된다. 다른 구현예에서, 더 작은 용량이 부스터에 사용된다. 다른 구현예에서, 본 발명의 방법은 부스터 백신접종을 대상에 투여하는 단계를 추가로 포함한다. 일 구현예에서, 부스터 백신접종은 단일 프라이밍 백신접종을 뒤따른다. 다른 구현예에서, 단일 부스터 백신접종은 프라이밍 백신접종 후 투여된다. 다른 구현예에서, 두 개의 부스터 백신접종이 프라이밍 백신접종 후 투여된다. 다른 구현예에서, 세 개의 부스터 백신접종이 프라이밍 백신접종 후 투여된다. 일 구현예에서, 프라임 및 부스터 균주 사이의 기간은 당업자에 의해 실험적으로 결정된다. 다른 구현예에서, 프라임 및 부스트 균주 사이의 기간은 1 주이고, 다른 구현예에서는 2 주이고, 다른 구현예에서는 3 주이고, 다른 구현예에서는 4 주이고, 다른 구현예에서는 5 주이고, 다른 구현예에서는 6-8 주이고, 또 다른 구현예에서 부스트 균주는 프라임 균주 8-10 주 후에 투여된다.
다른 구현예에서, 본 발명의 방법은 본원에 개시되는 약독화 리스테리아 균주를 포함하는 면역원성 조성물로 대상을 부스팅하는 단계를 추가로 포함한다. 다른 구현예에서, 본 발명의 방법은 본원에 개시되는 약독화 리스테리아 균주를 포함하는 면역원성 조성물의 부스터 용량을 투여하는 단계를 포함한다. 다른 구현예에서, 부스터 용량은 상기 면역원성 조성물의 대체 형태이다. 다른 구현예에서, 본 발명의 방법은 부스터 면역원성 조성물을 대상에 투여하는 단계를 추가로 포함한다. 일 구현예에서, 부스터 용량은 상기 면역원성 조성물의 단일 프라이밍 용량을 뒤따른다. 다른 구현예에서, 단일 부스터 용량이 프라이밍 용량 이후 투여된다. 다른 구현예에서, 두 개의 부스터 용량이 프라이밍 용량 이후 투여된다. 다른 구현예에서, 세 개의 부스터 용량이 프라이밍 용량 이후 투여된다. 일 구현예에서, 본원에 개시되는 약독화 리스테리아를 포함하는 면역원성 조성물의 프라임과 부스트 용량 사이의 기간은 당업자에 의해 실험적으로 결정된다. 다른 구현예에서, 이 용량은 당업자에 의해 실험적으로 결정된다. 다른 구현예에서, 프라임과 부스트 용량 사이의 기간은 1 주이고, 다른 구현예에서는 2 주이고, 다른 구현예에서는 3 주이고, 다른 구현예에서는 4 주이고, 다른 구현예에서는 5 주이고, 다른 구현예에서는 6-8 주이고, 또 다른 구현예에서 부스트 용량은 면역원성 조성물의 프라임 용량 8-10 주 후에 투여된다.
이종 "프라임 부스트" 전략은 면역 반응 증진 및 다수의 병원체에 대한 보호에 효과가 있었다. Schneider 등, Immunol. Rev. 170:29-38(1999); Robinson, H. L., Nat. Rev. Immunol. 2:239-50(2002); Gonzalo, R. M. 등, Strain 20:1226-31(2002); Tanghe, A., Infect. Immun. 69:3041-7(2001). 프라임 및 부스트 주사에서 상이한 형태로 항원을 제공하는 것은 항원에 대한 면역 반응을 최대화하는 것처럼 보인다. DNA 균주 프라이밍 이후, 보강제 중 단백질로 부스팅하거나 항원을 암호화하는 DNA의 바이러스 벡터 전달이 항원 특이적 항체 및 CD4+T-세포 반응 또는 CD8+T-세포 반응을 각각 향상시키는 가장 효과적인 방법인 것처럼 보인다. Shiver J. W. 등, Nature 415: 331-5(2002); Gilbert, S. C. 등, Strain 20:1039-45(2002); Billaut-Mulot, O. 등, Strain 19:95-102(2000); Sin, J. I. 등, DNA Cell Biol. 18:771-9(1999). 원숭이 백신접종 연구의 최근 데이터에서는, HIV gag 항원을 암호화하는 DNA에 CRL1005 폴록사머(12kDa, 5% POE)를 첨가하는 것이, 원숭이를 HIV gag DNA 프라임으로 백신접종 후 HIV gag를 발현하는 아데노바이러스 벡터(Ad5-gag)로 부스트시 T-세포 반응을 향상시킨다고 제시한다. DNA/폴록사머 프라임 이후 Ad5-gag 부스트에 대한 세포 면역 반응은 DNA(폴록사머 없음) 프라임 이후 Ad5-gag 부스트 또는 Ad5-gag 만으로 유도된 반응보다 컸다. Shiver, J. W. 등 Nature 415:331-5(2002). 미국 특허 출원 공개 번호 US 2002/0165172 A1은, 면역 반응이 생성되도록 항원의 면역원성 부분을 암호화하는 벡터 구성체 및 항원의 면역원성 부분을 포함하는 단백질의 동시 투여를 설명한다. 이 문헌은 B 형 간염 항원과 HIV 항원으로 한정된다. 또한, 미국 특허 번호 제6,500,432호는 관심있는 폴리뉴클레오티드와 폴리펩티드의 동시 투여에 의해 핵산 백신접종의 면역 반응을 증진시키는 방법에 관한 것이다. 이 특허에 따르면, 동시 투여는 동일한 면역 반응 동안, 바람직하게는 서로 0-10 또는 3-7일 이내에 폴리뉴클레오티드와 폴리펩티드의 투여를 의미한다. 특허에 의해 고려되는 항원은, 그 중에서도, 간염(모든 형태), HSV, HIV, CMV, EBV, RSV, VZV, HPV, 소아마비, 인플루엔자, 기생충(예를 들어, 플라스모듐 속 유래), 및 병원성 박테리아(M. 튜버큘로시스, M. 레프래, 클라미디아, 쉬겔라, B. 부르그도르페리, 독소원성 E. coli, S. 티포사, H. 파일로리, V. 콜레라, B. 페르투시스 등을 포함하나, 이에 제한되지 않음)의 항원을 포함한다. 위 참고 문헌 모두는 본원에 그 전체가 참조로 인용된다.
일 구현예에서, 본 발명의 처치 프로토콜은 치료적이다. 다른 구현예에서, 프로토콜은 예방적이다. 다른 구현예에서, 본 발명의 조성물은 유방암 같은 암 또는 가족 유전학으로 인한 기타 유형의 종양 또는 당업자에 의해 이해될 것과 같이 이들 유형의 질환에 걸리기 쉽게 하는 다른 상황에 대한 위험에 있는 사람을 보호하기 위해 사용된다. 다른 구현예에서, 백신은 수술, 통상의 화학요법 또는 방사선 치료에 의해 종양 성장을 감축시킨 후 암 면역요법으로서 사용된다. 이러한 치료 후, 본 발명의 백신은 백신의 종양 항원에 대한 CTL 반응이 남아 있는 전이를 파괴하고 암으로부터의 차도를 연장시키기 위해 투여된다. 다른 구현예에서, 본 발명의 백신은 이전에 확립된 종양의 성장에 영향을 미치고 기존의 종양 세포를 죽이기 위해 사용된다.
일부 구현예에서, 용어 "포함하다"또는 이의 문법적 형태는 표시된 활성 물질, 예를 들어 본 발명의 Lm 균주의 포함뿐 아니라 다른 활성 물질, 예를 들어 항체 또는 이의 기능적 단편, 및 제약 산업에 알려진 약제학적으로 허용 가능한 담체, 부형제, 연화제, 안정화제 등의 포함을 가리킨다. 일부 구현예에서, 용어 "필수적으로 구성되는"은 유일한 활성 성분이 표시된 활성 성분이지만, 제형의 안정화, 보존 등을 위하여 포함될 수 있지만 표시된 활성 성분의 치료적 효과에 직접적으로 연관되지 않는 다른 화합물이 포함될 수 있는 조성물을 가리킨다. 일부 구현예에서, 용어 "필수적으로 구성되는"은 표시된 활성 성분과 구분되는 기전을 통해 치료적 효과를 발휘하는 성분을 가리킬 수 있다. 일부 구현예에서, 용어 "필수적으로 구성되는"은 표시된 활성 성분과 구분되는 계열의 화합물에 속하고 치료적 효과를 발휘하는 성분을 가리킬 수 있다. 일부 구현예에서, 용어 "필수적으로 구성되는"은, 예를 들어 상이한 작용 기전을 통해 작용함으로써, 표시된 활성 성분과 구분될 수 있고 치료적 효과를 발휘하는 성분을 가리킬 수 있다. 일부 구현예에서, 용어 "필수적으로 구성되는"은 활성 성분의 방출을 용이하게 하는 성분을 가리킬 수 있다. 일부 구현예에서, 용어 "구성되는"은 활성 성분 및 약제학적으로 허용 가능한 담체 또는 부형제를 포함하는 조성물을 가리킨다.
본원에서 사용되는 단수 형태, "a", "an" 및 "the"는, 문맥상 명백하게 다르게 명시하지 않는 한 복수의 언급을 포함한다. 예를 들어, 용어 "a 화합물" 또는 "적어도 하나의 화합물"은 이의 혼합물을 포함한 복수의 화합물을 포함할 수 있다.
본원 전체에 걸쳐, 본 발명의 다양한 구현예들은 범위 형식으로 제시될 수 있다. 범위 형식의 설명은, 편의성과 간략성을 위한 것일 뿐이며, 본 발명의 범위를 변경할 수 없게 한정하는 것으로서 해석해서는 안 된다는 점을 이해하여야 한다. 이에 따라, 범위의 설명은, 모든 가능한 서브 범위 및 그 범위 내의 개별적인 수치 값을 특정하게 개시한 것으로서 고려해야 한다. 예를 들어, 1 내지 6과 같은 범위의 설명은, 1 내지 3, 1 내지 4, 1 내지 5, 2 내지 4, 2 내지 6, 3 내지 6 등의 서브 범위, 및 그 범위 내의 개별적인 수, 예를 들어, 1, 2, 3, 4, 5, 6을 특정하게 개시한 것으로서 고려해야 한다. 이는 범위의 폭에 상관없이 적용된다.
본원에서 수치 범위가 표시될 때마다, 표시된 범위 내에서 임의의 언급되는 수치(분수 형태 또는 정수 형태)를 포함하는 것을 의미한다. 제1 표시 수와 제2 표시 수 "사이에 걸치는/걸치다"및 제2 표시 수"까지"제1 표시 수"로부터 걸치는/걸치다"라는 구절은, 본원에서 상호 교환 가능하게 사용되며, 제1 표시 수와 제2 표시 수 및 이들 사이의 모든 분수와 정수 형태의 수를 포함하는 것을 의미한다.
본원에서 사용되는 "방법"이라는 용어는, 화학적, 약학적, 생물학적, 생화학적 및 의료 분야의 실무자에게 알려져 있거나 이들에 의해 알려져 있는 방식, 수단, 기법 및 절차로부터 용이하게 개발되는 방식, 수단, 기법 및 절차를 포함하지만 이에 한정되지 않는, 주어진 작업을 달성하기 위한 방식, 수단, 기법 및 절차를 가리킨다.
다음의 실시예에서, 다수의 특정 세부사항은 본 발명의 완전한 이해를 제공하기 위해 제시된다. 그러나, 본 발명은 이들 특정 세부사항 없이도 실시될 수 있음을 당업자라면 이해할 것이다. 다른 예에서, 주지의 방법, 절차 및 요소는 본 발명을 불명료하게 하지 않도록 상세하게 설명되지 않았다.
실시예
재료 및 실험 방법(실시예 1-2)
세포주
C57BL/6 동계 TC-1 종양을 HPV-16 E6 및 E7로 불멸화시키고 c-Ha-ras 종양유전자로 형질전환하였다. T. C. Wu(존스홉킨스 의과대학, 메릴랜드주 볼티모어)에 의해 제공된 TC-1은, 낮은 수준의 HPV-16 E6과 E7을 발현하고 c-Ha-ras 종양 유전자로 형질전환된 고 종양 형성 폐 상피 세포이다. 10% CO2와 37°에서, RPM 1640, 10% FCS, 2 mM L-글루타민, 100 U/ml 페니실린, 100 μg/ml 스트렙토마이신, 100 μM 비필수 아미노산, 1 mM 피루브산나트륨, 50 마이크로몰(mcM) 2-ME, 400 마이크로그램(mcg)/ml G418, 및 10% 내셔컬 컬렉션형 배양물-109 배지에 TC-1을 성장시켰다. C3은, HPV16의 완전한 게놈으로 불멸화되고 pEJ-ras로 형질전환된 C57BL/6 마우스로부터의 마우스 배아 세포이다. EL-4/E7은 E7로 레트로바이러스 형질도입된 티모마 EL-4이다.
L.
모노사이토게네스
균주 및 증식
사용된 리스테리아 균주는, 본원에서 ADXS11-001로도 언급되는 Lm-LLO-E7(에피솜 발현계의 hly-E7 융합 유전자; 도 1a), Lm-E7(리스테리아 게놈에 통합된 단일-카피 E7 유전자 카세트), Lm-LLO-NP("DP-L2028"; 에피솜 발현계의 hly-NP 융합 유전자), 및 Lm-Gag("ZY-18"; 염색체에 통합된 단일-카피 HIV-1 Gag 유전자 카세트)이었다. E7는 프라이머 5'-GGCTCGAGCATGGAGATACACC-3' (서열번호: 51; XhoI 위치는 밑줄이 그어져 있음) 및 5'-GGGGACTAGTTTATGGTTTCTGAGAACA-3' (서열번호: 52; SpeI 위치는 밑줄이 그어져 있음)를 사용하여 PCR에 의해 증폭되고 pCR2.1(Invitrogen사, 캘리포니아주 샌디에고)에 연결되었다. E7을 XhoI/ SpeI 소화에 의해 pCR2.1로부터 잘라내고, pGG-55에 연결하였다. hly-E7 융합 유전자 및 다능성 전사 인자 prfA는 pGG-55를 생성하며, 다중복제 셔틀 플라스미드(Wirth R 등, J Bacteriol, 165: 831, 1986)인, pAM401로 클로닝되었다. hly 프로모터는 hly 유전자 산물(용혈성 C-말단이 결여됨, "ΔLLO"로서 하기에 언급되고, 서열번호: 3으로 제시되는 서열을 가짐)의 처음 441 AA 아미노산의 발현을 구동하며, 이것은 E7 유전자에 Xhol 위치로 결합되어, LLO-E7로서 전사되고 분비되는 hly-E7 융합 유전자를 산출한다. 플라스미드의 생체내 보유를 위해 선택된 PGG-55에 의한 (펜실바니아대 Hao Shen 박사에 의해 제공되는) 리스테리아의 PrfA 음성 균주 XFL-7의 형질전환(도 1a-1b). hly 프로모터 및 유전자 단편은 프라이머 5'-GGGGGCTAGCCCTCCTTTGATTAGTATATTC-3' (서열번호: 53; NheI 위치는 밑줄이 그어져 있음) 및 5'-CTCCCTCGAGATCATAATTTACTTCATC-3' (서열번호: 54; XhoI 위치는 밑줄이 그어져 있음)를 사용하여 생성되었다. prfA 유전자는 프라이머 5'-GACTACAAGGACGATGACCGACAAGTGATAACCCGGGATCTAAATAAATCCGTTT-3' (서열번호: 55; XbaI 위치는 밑줄이 그어져 있음) 및 5'-CCCGTCGACCAGCTCTTCTTGGTGAAG-3' (서열번호: 56; SalI 위치는 밑줄이 그어져 있음)를 사용하여 PCR 증폭되었다. E7의 분비와 발현을 구동하는 신호 서열과 hly 프로모터를 포함하는 발현 카세트를 LM 게놈의 orfZ 도메인 내에 도입하여 Lm-E7을 생성하였다. E7는 프라이머 5'-GC GGATCCCATGGAGATACACCTAC-3' (서열번호: 57; 위치는 밑줄이 그어져 있음) 및 5'-GC TCTAGATTATGGTTTCTGAG-3' (서열번호: 58; 위치는 밑줄이 그어져 있음)를 사용하여 PCR에 의해 증폭되었다. 다음에 E7을 pZY-21 셔틀 벡터에 연결하였다. LM 균주 10403S를 형성된 플라스미드인 pZY-21-E7로 형질전환하였는데, 이 플라스미드는 LM 게놈의 orfX, Y, Z 도메인에 대응하는 1.6kb 서열의 중간에 삽입된 발현 카세트를 포함한다. 상동 도메인은, 상동 재조합에 의한 E7 유전자 카세트의 orfZ 도메인 내로의 삽입을 허용한다. E7 유전자 카세트의 orfZ 도메인 내로의 통합을 위해 클론을 선별하였다. (Lm-LLO-E7 및 Lm-LLO-NP)가 있거나 (Lm-E7 및 ZY-18) 클로람페니콜(20 μg/ml)이 없는 뇌 심장 침출액 배지에서 박테리아를 성장시켰다. 박테리아를 -80°C에서 부분 표본에 동결하였다. 웨스턴 블롯팅에 의해 발현을 검증하였다(도 2).
웨스턴
블롯팅
리스테리아 균주는 37℃에서 루리아-베르토니 배지(Luria-Bertoni medium)에서 성장하였으며 600 nm에서 측정된 동일한 광학 밀도에서 수확되었다. 상등액을 TCA 침전시키고, 0.1N NaOH가 보충된 1x 샘플 완충액에서 재현탁시켰다. 각 세포 펠릿 또는 각 TCA-침전된 상등액의 동일한 양을 4-20% Tris-글리신 SDS-PAGE 겔(NOVEX, 캘리포니아주 샌디에고)에 로딩하였다. 겔을 폴리비닐리덴 디플루오라이드로 옮기고, 항-E7 단클론 항체(mAb)(Zymed Laboratories, 캘리포니아주 사우스 샌프란시스코)로 탐색한 후, HRP-접합된 항-마우스 2차 Ab(Amersham Pharmacia Biotech, 영국 리틀 챌폰트)와 함께 배양하고, Amersham ECL 검출 시약으로 현상하고, Hyperfilm(Amersham Pharmacia Biotech)에 노출시켰다.
종양 성장의 측정
최단 및 최장 표면 직경을 포괄하는 캘리퍼로 하루 걸러 종양을 측정하였다. 이들 두 측정값의 평균을 다양한 시점에서밀리미터 단위의 평균 종양 직경으로서 플롯팅하였다. 종양 직경이 20 mm에 도달했을 때 마우스를 희생시켰다. 각 시점에 대한 종양 측정값은 생존 마우스에 대해서만 도시된다.
확립된 종양 성장에 대한
리스테리아
재조합체의
영향
6- 내지 8-주령 C57BL/6 마우스(Charles River)는 좌측 옆구리에 2x10⁵ TC-1 세포를 s.c. 수용하였다. 종양 접종 후 1주일째, 종양은 직경이 4-5 mm인 감지 가능한 크기에 도달하였다. 다음에 8 마우스 그룹을 0.1 LD50 i.p. Lm-LLO-E7(107 CFU), Lm- E7(106 CFU), Lm-LLO-NP(107 CFU), 또는 Lm-Gag(5 x 10⁵ CFU)로 7 및 14 일째에 처치하였다.
51
Cr
방출 분석
6 내지 8 주령 C57BL/6 마우스를 0.1LD50 Lm-LLO-E7, Lm-E7, Lm-LLO-NP, 또는 Lm-Gag로 i.p. 면역화하였다. 면역화-후 10 일째, 비장을 수확하였다. 배양 보조 세포(feeder cell)로서 방사선 조사 TC-1 세포가 있는 배양물에서 비장세포를 확립하였고(100:1, 비장 세포: TC-1); 5 일 동안 시험관내 자극한 후, 다음 표적을 사용하여 표준 51Cr 방출 분석에 사용하였다: EL-4, EL-4/E7, 또는 E7 H-2b 펩티드(RAHYNIVTF)로 펄스 처리된 EL-4. 3 회 수행된 E:T 세포 비율은 80:1, 40:1, 20:1, 10:1, 5:1, 및 2.5:1이었다. 37℃에서 4 시간 배양 후, 세포를 펠릿 처리하고, 50 ㎕ 상등액을 각 웰로부터 제거하였다. Wallac 1450 섬광 계수기(Gaithersburg, MD)로 샘플을 분석하였다. 특이적 용해 백분율을 [(분당 실험 카운트(cpm)-자발적 cpm)/(총 cpm-자발적 cpm)] x 100으로서 결정하였다.
TC
-1 특이성 증식
C57BL/6 마우스를 0.1 LD50로 면역시키고, 1 LD50 Lm-LLO-E7, Lm-E7, Lm-LLO-NP 또는 Lm-Gag로 20 일후 i.p. 주사에 의해 부스팅하였다. 부스팅 후 6 일째, 면역된 미처리 마우스로부터 비장을 수확하였다. E7 Ag의 공급원으로서 2.5 x 10⁴, 1.25 x 10⁴, 6 x 10³, 또는 3 x 10³ 방사선 조사된 TC-1 세포/웰, 또는 TC-1 세포 없이, 또는 10 μg/ml Con A가 있는, 바닥이 평평한 96-웰 플레이트에서 5x10⁵/웰로 배양액에 비장 세포를 확립하였다. 45 시간 후에 세포를 0.5 μCi [3H]티미딘/웰로 펄스 처리하였다. Tomtec harvester 96(코네티컷주 오렌지)을 사용하여 18 시간 후에 플레이트를 수확하고, Wallac 1450 섬광 계수기로 증식을 평가하였다. cpm의 변화를 실험적 cpm - no Ag cpm으로서 계산하였다.
유동 세포 분석
C57BL/6 마우스를 0.1 LD50 Lm-LLO-E7 또는 Lm-E7로 정맥 내(i.v.) 면역화시키고 30 일 후 부스팅하였다. CellQuest® 소프트웨어를 구비한 FACSCalibur® 유동 세포 분석기(Becton Dickinson, 캘리포니아주 마운틴 뷰)를 사용하여 CD8(53-6.7, PE 접합형), CD62 리간드(CD62L; MEL-14, APC 접합형), 및 E7 H-2Db 테트라머에 대한 3-색 유동 세포 분석을 수행하였다. 부스트 후 5 일째 채취한 비장세포를, E7 펩티드(RAHYNIVTF) 또는 대조(HIV-Gag) 펩티드가 로딩된 H-2Db 4합체로 실온(rt)에서 염색하였다. 4합체는 1/200 희석으로 사용하고, Dr. Larry R. Pease(Mayo Clinic, 미네소타주 로체스터) 및 NIAID Tetramer Core Facility 및 NIH AIDS Research and Reference Reagent Program에 의해 제공되였다. 4합체+, CD8+, CD62Llow 세포를 분석하였다.
B16F0
-난자 실험
24 마리의 C57BL/6 마우스를 5x10⁵ B16F0-난자 세포로 접종하였다. 3, 10, 및 17 일째, 0.1 LD50 Lm-OVA (106 cfu), Lm-LLO-OVA (108 cfu)로 8 마우스 그룹을 면역시키고, 8 마리 동물은 비처치 상태로 두었다.
통계
종양 직경의 비교를 위해, 각 그룹에 대한 종양 크기의 평균 및 SD를 측정하고, 스튜던트 t 검정에 의해 통계적 유의성을 결정하였다. p ≤ 0.05는 유의성을 갖는 것으로 고려되었다.
실시예
1:
LLO
-항원 융합은 항종양 면역성을
유도한다
결과
TC-1 성장에 영향을 미치는 능력에 대하여 Lm-E7 및 Lm-LLO-E7을 비교하였다. C57BL/6 마우스의 좌측 옆구리에 피하 종양을 확립하였다. 7 일 후, 종양이 검출 가능한 크기(4-5 mm)에 도달하였다. 0.1 LD50 Lm-E7, Lm-LLO-E7, 또는 대조군인 Lm-Gag 및 Lm-LLO-NP로 7 및 14 일째 마우스를 백신접종하였다. Lm-LLO-E7은 확립된 TC-1 종양의 75%의 완전한 퇴행을 유도한 한편, 그룹 내 다른 2 마리 마우스에서 종양 성장을 제어하였다(도 3). 대조적으로, Lm-E7과 Lm-Gag에 의한 면역화는 종양 퇴행을 유도하지 않았다. 이 실험을 여러 번 반복하였으며, 항상 매우 유사한 결과를 얻었다. 또한, 상이한 면역화 프로토콜 하에 Lm-LLO-E7에 대하여 유사한 결과를 얻었다. 다른 실험에서, 확립된 5 mm TC-1 종양이 있는 마우스를 단일 면역화로 치유할 수 있었다.
다른 실험에서, 2개의 다른 E7-발현 종양 세포주: C3 및 EL-4/E7로 유사한 결과를 얻었다. Lm-LLO-E7에 의한 백신접종의 효능을 확인하기 위해, 종양이 제거된 동물을 상대로 60 또는 40 일째 TC-1 또는 EL-4/E7 종양 세포로 각각 재-도전하였다. Lm-LLO-E7로 면역된 동물들은 실험 종료(TC-1의 경우 124 일째 및 EL-4/E7의 경우 54 일째)까지 종양이 없는 상태가 유지되었다.
따라서, ΔLLO와의 융합 단백질로서의 항원의 발현은 항원의 면역원성을 향상시킨다.
실시예
2: LM-
LLO
-E7 처치는
TC
-1 특이적
비장세포
증식을
유발한다
Lm-LLO-E7을 이용한 Lm-E7에 의한 T 세포의 유도를 측정하기 위해, 항원-특이적 면역능력의 척도인 TC-1-특이적 증식 반응을 면역화된 마우스에서 측정하였다. Lm-LLO-E7-면역화 마우스로부터의 비장세포는 E7의 공급원으로서 방사선 조사된 TC-1 세포에 노출시, 20:1, 40:1, 80:1, 및 160:1의 비장 세포:TC-1 비율로 증식되었다(도 4). 역으로, Lm-E7 및 rLm 대조-면역화된 마우스로부터의 비장세포는 단지 백그라운드 수준의 증식만을 나타내었다.
실시예
3:
ActA
-E7 및 PEST-E7 융합은 항-종양 면역성을
부여한다
재료 및 방법
Lm-
ActA
-E7의 제작
Lm-ActA-E7은 LM의 재조합 균주로, actA 단백질의 절단된 버전에 융합된 E7 단백질을 발현하는 플라스미즈를 포함한다. Lm-actA-E7은 pDP-2028을 변형시켜 구축된 플라스미드 벡터 pDD-1를 리스테리아로 도입함으로써 생성되었다. pDD-1은 310 bp hly 프로모터 및 hly 신호 서열(ss)의 카피를 발현하는 발현 카세트를 포함하는데, 이는 ActA-E7의 발현 및 분비를 구동한다; 4 개의 PEST 서열을 포함하는 actA 유전자의 1170 bp(서열번호: 14)(분자의 처음 390 AA로 구성되는 절단된 ActA 폴리펩티드, 서열번호: 12); 300 bp HPV E7 유전자; 1019 bp prfA 유전자(병원성 유전자의 대조 발현); 및 형질전환된 박테리아 클론의 선택을 위한 CAT 유전자(클로람페니콜 저항성 유전자)(Sewell 외, (2004), Arch.Otolaryngol.Head Neck Surg., 130:92-97).
hly 프로모터(pHly) 및 유전자 단편은 프라이머 5'-GGGG TCTAGACCTCCTTTGATTAGTATATTC-3' (Xba I 위치는 밑줄 그어져 있음; 서열번호: 59) 및 프라이머 5'-ATCTTCGCTATCTGTCGCCGCGGCGCGTGCTTCAGTTTGTTGCGC-'3 (I 위치는 밑줄 그어져 있음. 처음 18 뉴클레오티드는 ActA 유전자 중복임; 서열번호: 60)를 사용하여 pGG55(실시예 1)로부터 PCR 증폭되었다. actA 유전자는 프라이머 5'-GCGCAACAAACTGAAGCAGCGGCCGCGGCGACAGATAGCGAAGAT-3' (NotI 위치는 밑줄 그어져 있음; 서열번호: 61) 및 프라이머 5'-TGTAGGTGTATCTCCATGCTCGAGAGCTAGGCGATCAATTTC-3' (XhoI 위치는 밑줄 그어져 있음; 서열번호: 62)를 사용하여 LM 10403s 야생형 게놈으로부터 PCR 증폭되었다. E7 유전자는 프라이머 5'-GGAATTGATCGCCTAGCTCTCGAGCATGGAGATACACCTACA-3' (XhoI 위치는 밑줄 그어져 있음; 서열번호: 63) 및 프라이머 5'-AAACGGATTTATTTAGATCCCGGGTTATGGTTTCTGAGAACA-3' (XmaI 위치는 밑줄 그어져 있음; 서열번호: 64)를 사용하여 pGG55(pLLO-E7)로부터 PCR 증폭되었다. prfA 유전자는 프라이머 5'-TGTTCTCAGAAACCATAACCCGGGATCTAAATAAATCCGTTT-3' (Xmal 위치는 밑줄 그어져 있음; 서열번호: 65) 및 프라이머 5'-GGGGGTCGACCAGCTCTTCTTGGTGAAG-3' (SalI 위치는 밑줄 그어져 있음; 서열번호: 66)를 사용하여 LM 10403s 야생형 게놈으로부터 PCR 증폭되었다. hly 프로모터-actA 유전자 융합(pHly-actA)은 PCR 생성되었고 정제된 pHly DNA 및 정제된 actA DNA로부터 업스트림 pHly 프라이머(서열번호: 59) 및 다운스트림 actA 프라이머(서열번호: 62)를 사용하여 증폭되었다.
prfA 유전자에 융합된 E7 유전자(E7-prfA)는 PCR 생성되었고 정제된 E7 DNA 및 정제된 prfA DNA로부터 업스트림 E7 프라이머(서열번호: 63) 및 다운스트림 prfA 유전자 프라이머(서열번호: 66)을 사용하여 증폭되었다.
E7-prfA 융합 산물에 융합된 pHly-actA 융합 산물은 PCR 생성되었으며 정제된 융합 pHly-actA DNA 산물 및 정제된 융합 E7-prfA DNA 산물로부터 업스트림 pHly 프라이머(서열번호: 59) 및 다운스트림 prfA 유전자 프라이머(서열번호: 66)을 사용하여 증폭되었고 pCRII(Invitrogen, 라 졸라, 캘리포니아)로 연결되었다. 형질전환성 대장균(competent E. coli)(TOP10'F, Invitrogen, 라 졸라, 캘리포니아)은 pCRII-ActAE7로 형질전환되었다. 용해 및 단리 이후, 플라스미드는 BamHI(예상되는 단편 크기 770 bp 및 6400 bp (또는 삽입체가 벡터로 역전시: 2500 bp 및 4100 bp)) 및 BstXI(예상되는 단편 크기 2800 bp 및 3900 bp)을 사용하여 제한 분석에 의해 스크리닝되었고, 업스트림 pHly 프라이머(서열번호: 59) 및 다운스트림 prfA 유전자 프라이머(서열번호: 66)을 사용하여 PCR 분석으로 스크리닝되었다.
pHly-actA-E7-prfA DNA 삽입체는 Xba I 및 Sal I의 이중 분해에 의해 pCRII로부터 절단되고 Xba I 및 Sal I로 또한 분해된 pDP-2028로 연결되었다. 발현 시스템 pActAE7로 TOP10'F 형질전환성 E. coli (Invitrogen, La Jolla, Calif.)를 형질전환 후, 클로람페니콜 저항성 클론을 업스트림 pHly 프라이머(서열번호: 59) 및 다운스트림 PrfA 유전자 프라이머(서열번호: 66)를 사용한 PCR 분석에 의해 스크리닝하였다. pActAE7을 포함하는 클론은 뇌 심장 침출액 배지(클로로람페니콜(20 mcg(마이크로그램)/ml(밀리리터) 함유, Difco, Detroit, Mich.)에서 성장시키고 pActAE7는 미디프렙 DNA 정제 시스템 키트(Promega, Madison, Wis.)를 사용하여 박테리아 세포로부터 단리하였다. 페니실린-처치된 리스테리아(균주 XFL-7)의 prfA-음성 균주는 Ikonomidis 등 (1994, J. Exp. Med. 180: 2209-2218)에 기재된 바와 같이, 발현 시스템 pActAE7으로 형질전환하고 클론은 생체내 플라스미드의 유지를 위해 선별하였다. 클론은 37℃에서 클로람페니콜(20 mcg/ml)과 함께 뇌 심장 침출액에서 성장하였다. 박테리아는 부분표본에서 -80℃로 냉동시켰다.
항원 발현의
면역블롯
검증
Lm-ActA-E7가 ActA-E7를 분비하는지 확인하기 위해 (약 64 kD), 리스테리아 균주를 37℃에서 루리아-베르토니(LB) 배지 중 성장시켰다. 단백질을 트리클로로아세트산(TCA)으로 배양 상등액에서 침전시키고 0.1 N 수산화나트륨으로 1x 샘플 완충액에 재현탁하였다. 각 TCA 침전된 상등액의 동일한 양을 4% 내지 20% Tris-글리세린 소듐 도데실 설페이트-폴리아크릴아미드 겔(NOVEX, San Diego, Calif) 상에 로딩하였다. 겔을 폴리비닐리덴 디플루오라이드 멤브레인으로 이동하고 1:2500 항-E7 단클론 항체(Zymed Laboratories, South San Francisco, Calif)로, 다음에 1:5000 호스래디쉬 퍼옥시다제-공액 항-마우스 IgG(Amersham Pharmacia Biotech, Little Chalfont, England)로 탐색하였다. 블롯을 Amersham 인핸스드 화학발광 검출 시약으로 현상하고 방사능 사진 필름(Amersham)에 노출시켰다(도 5a).
Lm-PEST-E7, Lm-
ΔPEST
-E7, 및 Lm-
E7epi의
제작
(도 6a)
Lm-PEST-E7는 hly 유전자의 프로모터 및 PEST 서열, 특히 LLO의 처음 50 AA를 포함한다는 것을 제외하고는, Lm-LLO-E7과 동일하다. Lm-PEST-E7를 제작하기 위해, hly 프로모터 및 PEST 영역을 SOE(중첩 연장에 의한 유전자 스플라이싱) PCR 기법을 사용하여 전장 E7 유전자에 융합시켰다. E7 유전자 및 hly-PEST 유전자 단편을, LLO의 처음 441 AA를 포함하는 플라스미드 pGG-55로부터 증폭시키고, 통상의 PCR 기법에 의해 함께 스플라이싱시켰다. 최종 플라스미드인 pVS16.5를 형성하기 위해, hly-PEST-E7 단편 및 prfA 유전자를 시험관내 선별을 위해 클로람페니콜 저항성 유전자를 포함하는 플라스미드 pAM401로 서브클로닝하고, 생성된 플라스미드를 사용하여 XFL-7을 형질전환하였다.
Lm-ΔPEST-E7은 PEST 서열이 결여되었다는 것을 제외하고는 Lm- LLO-E7과 동일한 재조합 리스테리아 균주이다. 에피솜 발현 시스템은 hly-E7 융합 유전자로부터 PEST-포함 영역(bp 333 내지 387)를 제거하기 위해 설계된 프라이머를 사용하여 제작되었다는 것을 제외하고는, 본질적으로 Lm-PEST-E7에 대해 기재된 것과 같이 제조되었다. Lm-E7epi는 PEST 영역 또는 LLO 없이 E7을 분비하는 재조합 균주이다. 이 균주를 형질전환 하기 위해 사용되는 플라스미드는 E7 유전자에 융합된 신호 서열 및 hly 프로모터의 유전자 단편을 포함한다. 이 구성체는 본래의 Lm-E7과는 상이한데, 이것은 염색체로 통합된 E7 유전자의 단일 카피를 발현하였다. Lm-E7epi는 발현된 E7 항원의 형태를 제외하고는 Lm- LLO-E7, Lm-PEST-E7, 및 Lm-ΔPEST-E7와 완벽하게 동종이다.
결과
Lm-ActA-E7 대 Lm-LLO-E7에 의해 유도된 항-종양 면역을 비교하기 위해, 2 x 10⁵ TC-1 종양 세포를 마우스에 피하 이식하고 감지 가능한 크기(대략 5 밀리미터[mm])로 성장하도록 하였다. 마우스는 7 및 14 일째에 Lm-ActA-E7(5 x10⁸ CFU)(십자가), Lm-LLO-E7(108 CFU)(사각형) 또는 Lm-E7(106 CFU)(원) 중 하나의 LD50으로 i.p. 면역화되었다. 26 일째, 모든 미처리 동물(삼각형) 및 Lm-E7로 면역화된 동물이 대형 종양을 성장시킨 반면, Lm-LLO-E7 및 Lm-ActA-E7에서는 모든 동물이 종양이 없었고 그렇게 유지되었다(도 5b). 따라서, ActA-E7 융합으로의 백신접종은 종양 퇴행을 야기한다.
또한, Lm-LLO-E7, Lm-PEST-E7, Lm-ΔPEST-E7, 및 Lm-E7epi에 대하여 E7-발현 종양의 퇴행을 야기하는 그들의 능력을 비교하였다. s.c. TC-1 종양을 40 마리 C57BL/6 마우스의 좌측 옆구리에 확립시켰다. 종양이 4 내지 5 mm에 도달한 이후, 마우스를 8 마리의 5 그룹으로 나누었다. 각각의 그룹은 4 개의 재조합 LM 백신 중 하나로 처리하고, 1 그룹은 비처리로 방치하였다. Lm-LLO-E7 및 Lm-PEST-E7는 각각, 5/8 및 3/8 경우에 확립된 종양의 퇴행을 유도하였다. 임의의 시점에서 Lm-PEST-E7 또는 Lm-LLO-E7로 처리된 마우스의 평균 종양 크기 사이에는 통계적 차이가 없었다. 그러나, PEST 서열, Lm-ΔPEST-E7 및 Lm-E7epi 없이 E7을 발현하는 백신은, 하나를 제외하고는 모든 마우스에서 종양 퇴행을 야기하는데 실패하였다(도 6b, 상부 패널). 이것은 2 실험의 대표적인 것으로, 여기에서는 28 일째에 평균 종양 크기에서 통계적으로 유의미한 차이점이 Lm-LLO-E7 또는 Lm-PEST-E7로 처리된 종양과 Lm-E7epi 또는 Lm-ΔPEST-E7로 처리된 것 사이에서 발견되었다; P < 0.001, 스튜던트 t 검정; 도 6b, 하부 패널). 또한, 4합체-양성 비장세포의 증가된 백분율이 PEST-포함 백신으로 백신접종된 마우스의 비장에서 3 실험에 걸쳐 재현 가능하게 나타났다(도 6c). 따라서, PEST-E7 융합으로의 백신접종은 종양 퇴행을 야기한다.
실시예
4:
LLO
,
ActA
, 또는 PEST-유사 서열에 대한 E7의 융합은 E7-특이적
면역을 향상시키고 종양-침윤성 E7-특이적 CD8
+
세포를
생성한다
재료 및 실험 방법
인산염 완충 식염수(PBS) 중 2 x 10⁵ TC-1 종양 세포 100 mcl와 MATRIGEL®(BD Biosciences, Franklin Lakes, N.J.) 400 mcl를 포함하는 MATRIGEL® 500 mcl(마이크로리터)를 12 마리 C57BL/6 마우스(n=3)의 좌측 옆구리에 피하 이식하였다. 7, 14, 및 21 일째에 마우스를 복강내 면역시키고, 28 일째에 비장과 종양을 수확하였다. 마우스로부터 종양 MATRIGEL을 제거하고, 얼음 상에서 2 밀리리터(ml)의 RP 10 배지를 포함하는 튜브에서 밤새 4℃로 배양하였다. 종양을 겸자로 갈고, 2 mm 블록으로 절단하고, 3 ml의 효소 혼합물(PBS 중 0.2 mg/ml 콜라게나제-P, 1 mg/ml DNAse-1)과 함께 1 시간 동안 37℃에서 배양하였다. 조직 현탁액을 나일론 메쉬를 통해 여과하고, 4합체 및 IFN-감마 염색을 위해 PBS 중 5% 우태 혈청+0.05%의 NaN3으로 세척하였다.
브레펠딘 A의 존재 중 5 시간 동안 1 마이크로몰(mcm)의 E7 펩티드와 함께 비장세포 및 종양 세포를 107 세포/ml로 배양하였다. 세포를 2 회 세척하고, 50 mcl의 항-마우스 Fc 수용체 상등액(2.4 G2)에서 4℃로 1시간 동안 또는 밤새 배양하였다. 세포를 표면 분자 CD8 및 CD62L에 대하여 염색하고, 침투 키트 Golgi-stop® 또는 Golgi-Plug®(Pharmingen, 캘리포니아주 샌디에고)를 사용하여 침투, 고정하고, IFN-감마에 대해 염색하였다. 이중-레이저 유동 세포 분석기 FACSCalibur 를 사용하여 500,000개 이벤트를 얻고, Cellquest 소프트웨어(Becton Dickinson, 뉴저지주 프랭클린 레이크스)를 사용하여 분석하였다. 활성화된 (CD62Llow) CD8+ T 세포 내의 IFN-감마 분비 세포의 백분율을 계산하였다.
4합체 염색의 경우, 피코에리트린(PE)-접합 E7 펩티드(RAHYNIVTF, 서열번호: 67)로 H-2Db 4합체를 로딩하고, rt에서 1시간 동안 염색하고, 항-알로피코시아닌(APC) 접합 MEL-14(CD62L) 및 FITC-접합 CD8□로 4℃에서 30분 동안 염색하였다. 비장 및 종양에서의 4합체+CD8+ CD62Llow 세포를 비교하여 세포를 분석하였다.
결과
항원 특이적 면역성을 향상시키는 Lm-ActA-E7의 능력을 분석하기 위해, 마우스에 TC-1 종양 세포를 이식하고, Lm-LLO-E7(1 x 10⁷ CFU), Lm-E7 (1 x 10⁶ CFU), 또는 Lm-ActA-E7(2 x 10⁸ CFU)로 면역시키거나, 또는 처리하지 않았다(미처리). Lm-LLO-E7 및 Lm-ActA-E7 그룹으로부터의 마우스의 종양은 Lm-E7 또는 미처리 마우스에서보다 더 높은 백분율의 IFN-감마-분비 CD8+ T 세포(도 7a) 및 4합체-특이적 CD8+ 세포(도 7b)를 포함하였다.
다른 실험에서는, 종양이 있는 마우스에 Lm-LLO-E7, Lm-PEST-E7, Lm-ΔPEST-E7, 또는 Lm-E7epi를 투여하고, 종양 내의 E7-특이성 림프구의 수준을 측정하였다. 7 및 14 일째에 0.1 LD50의 4 개 백신으로 마우스를 처치하였다. 21 일째에 종양을 수확하고, CD62L, CD8에 대한 항체, 그리고 E7/Db 4합체로 염색하였다. 종양 내 4합체-양성 림프구의 증가된 백분율은 Lm-LLO-E7 및 Lm-PEST-E7로 백신접종된 마우스에서 관찰되었다(도 8a). 이 결과는 세 개 실험에 걸쳐 재현 가능하였다(도 8b).
따라서, Lm-LLO-E7, Lm-ActA-E7, 및 Lm-PEST-E7은 각각 종양-침윤성 CD8+ T 세포의 유도 및 종양 퇴행에 효과적이다.
실시예
5:
LLO
및
ActA
융합은 E6/E7 형질전환 마우스에서 자생(자발적)
종양을
감소시킨다
E6/E7 형질전환 마우스에서 자생 종양에 대한 Lm-LLO-E7 및 Lm-ActA-E7 백신의 영향을 결정하기 위해, 6 내지 8 주령의 마우스를 1 x 10⁸ Lm-LLO-E7 또는 2.5 x 10⁸ Lm-ActA-E7로 매달 1 회씩 8 개월 동안 면역화하였다. 최종 면역화 20 일 후 마우스를 희생시키고 이들의 갑상선을 제거하여 칭량하였다. 이 실험은 2 회 수행되었다(표 1).
표 1. 8 개월 시기에서 비백신접종 및 백신접종된 형질전환 마우스의 갑상선 중량(mg)(mg)*.
| 비처리 | + S.D. | Lm-LLO-NP | + S.D. | Lm-LLO-E7 | + S.D. | Lm-ActA-E7 | + S.D. |
| 실험 1 408 |
123 |
385 |
130 |
225 |
54 |
305 |
92 |
| 실험 2 588 |
94 |
503 |
86 |
239 |
68 |
275 |
84 |
* 스튜던트 t 검정을 사용하여 수행된 통계적 분석에서는 Lm-LLO-NP 처리된 마우스와 비처리 마우스 사이의 갑상선 중량 차이는 유의미하지 않았지만 Lm-LLO-E7와 Lm-ActA-E7 처리된 마우스 사이의 차이는 매우 유의미하였음을 보여주었다(p<0.001).
Lm-LLO-E7 처리된 마우스와 비처리 마우스 사이 및 Lm-LLO-ActA 처리된 마우스와 비처리 마우스 사이의 갑상선 중량의 차이는 두 실험 다에서 유의미한 반면(각각 p<0.001 및 p<0.05), Lm-LLO-NP 처리된 마우스(비관련 항원 대조)와 비처리 마우스 사이의 차이는 유의미하지 않아서(스튜던트 t 검정), Lm-LLO-E7 및 Lm-ActA-E7이 자발적 종양 성장을 제어한 것을 보여준다. 따라서, 본 발명의 백신은 새로운 E7-발현 종양의 형성을 방해한다.
위 실시예에서의 발견을 요약하면, LLO-항원 및 ActA-항원 융합은 (a) 종양-침윤성 항원-특이적 T 세포를 포함하는 종양-특이적 면역 반응을 유도하고; 정상 및 특히 침습성인 종양 둘 다의 종양 성장을 조절하고 종양 퇴행을 유도할 수 있으며; (b) 자기 항원에 대한 내성을 극복하고; 그리고 (c) 자발적 종양 성장을 방해한다. 이들 발견은, 다양한 상이한 항원, PEST-유사 서열, 및 종양 유형에서 이들의 성공적인 성취에 의해 입증되는 바와 같이, 다수의 항원, PEST-유사 서열, 및 종양 유형으로 일반화 가능하다.
실시예
6: LM-
LLO
-E7 백신은 안전하고 자궁경부암 환자에서
임상적 지표를
개선한다
재료 및 실험 방법
포함 기준. 임상에서 모든 환자는 "후기의 진행성 또는 재발성 자궁경부암"으로 진단받았고 진입 시점에서 평가는 모두 IVB 질환을 갖는 단계로 나타났다. 모든 환자는 칸디딘, 유행성 이하선염, 파상풍, 또는 투베르쿨린 정제 단백질 유도체(Tuberculin Purified Protein Derivative, PPD)로부터 선택되는 3 개 기억 항원을 포함하는 아너지 패널에 대한 양성 면역 반응을 나타내었고; 임신중 또는 HIV 양성이 아니었고, 4 주 이내에 시험용 약물도 복용하지 않았고, 스테로이드를 투여받지 않았다.
프로토콜: 환자에게는 3-주 간격으로 2 회의 백신접종이 입원환자에 대한 250 ml의 정상 식염수로 30-분 정맥내(IV) 주입으로서 투여되었다. 5 일 후, 환자는 단일 코스의 IV 암피실린을 투여받았고 추가로 10 일의 경구 암피실린과 함께 방출되었다. 카르노프스키 수행 지수(Karnofsky Performance Index)는 식욕, 일과 수행 능력, 편안한 수면 등과 같은 전반적 활력 및 삶의 질의 척도로서, 전반적인 웰빙(well-being)을 결정하기 위해 사용되었다. 또한, 다음의 안전성 및 일반적 웰빙의 지표가 결정되었다: 알칼리 포스파타제; 직접 빌리루빈 및 총 빌리루빈 둘 다; 감마 글루타밀 트랜스펩티다제(ggt); 콜레스테롤; 수축기, 이완기, 및 심박수; 질환 진행-카르노프스키 유사-삶의 질 지표를 평가하기 위한 이스턴 공동 종양학 그룹의 기준(Eastern Collaborative Oncology Group's(ECOG)'s criteria); 헤마토크리트; 헤모글로빈; 혈소판 수준; 림프구 수준; AST(아스파테이트 아미노트랜스퍼라제); ALT(알라닌 아미노트랜스퍼라제); 및 LDH(락테이트 데하이드로게나제). 환자들은 두 번째 투약 다음 3 주 및 3 개월에 관찰되었고, 이 시점에서 환자의 고형 종양에서의 반응 평가 기준(Response Evaluation Criteria in Solid Tumors, RECIST) 점수를 결정하고, 종양 크기를 결정하기 위한 스캔을 수행하고, 임상의 종점에서 면역학적 분석을 위한 혈액 샘플을 수집하였는데, 여기에는 IFN-γ, IL-4, CD4+ 및 CD8+ 세포 집단의 평가가 포함된다.
리스테리아 균주: LM-LLO-E7의 생성은 실시예 1에 기술된다.
결과
임상 시험에 앞서, LM-LLO-E7의 정맥내(i.v.) 대 i.p. 투여의 항-종양 효능을 결정하기 위해 전임상 실험이 수행되었다. 1 x 10⁴ TC-1 세포를 포함하는 종양이 피하로 확립되었다. 7 및 14 일째에, 마우스를 108 LM-LLO-E7 i.p. 또는 LM-LLO-E7 i.v.로 108, 107, 106, 또는 105 용량으로 면역화하였다. 35 일째에, 108 LM-LLO-E7를 어느 한 경로로, 또는 107 LM-LLO-E7 i.v를 받은 마우스의 5/8, 및 106 LM-LLO-E7 i.v를 받은 마우스의 4/8이 치유되었다. 대조적으로, 107 미만의 용량 또는 일부 경우 i.p. 투여된 108 LM-LLO-E7에서조차 종양 성장을 제어하는 데 효과가 없었다. 따라서, LM-LLO-E7의 i.v. 투여는 i.p. 투여보다 더 효과적이다.
임상 시험
I/II 상 임상 시험이 후기의 진행성, 또는 재발성 자궁경부암 환자에서 LM-LLO-E7 백신의 안전성 및 효능을 평가하기 위해 수행되었다. 5 인의 환자가 각각 집단 1-2로 할당되었고, 이들은 각각 1 x 10⁹ 또는 3.3 x 10⁹ CFU를 받았다. 추가로 5 인의 환자가 각각 집단 3-4로 할당될 것이고, 이들은 각각 1 x 10¹⁰ 또는 3.31 x 10¹⁰ CFU를 받을 것이다.
안전성 데이터
제1 집단
제1 집단의 모든 환자는 주입 개시 후 1-2 시간 이내에 경도-내지-중등도 발열 및 오한의 개시를 보고하였다. 일부 환자는 오심이 있거나 없는 구토를 보였다. 1 건의 예외와 함께(아래 기술됨), 단일 용량의 파라세타몰과 같은 비-스테로이드성 약제가 이들 증상을 해결하는 데 충분하였다. 보통의 일시적 심장혈관 작용이, 발열과 일치하고 시간 경로를 공유하여, 관찰되었다. 다른 유해 작용은 보고되지 않았다.
이러한 자궁경부암의 말기에서, 1 년 생존은 전형적으로 환자의 10-15%이고 어떠한 종양 요법도 효과적이지 않았다. 사실, 환자 2는 매우 침습성인 질환을 가진 젊은 환자로 임상 종료 후 바로 사망하였다.
정량적 혈액 배양물은 투여-후 2, 3, 및 5 일째에 평가하였다. 이 집단에서 5 인의 평가 가능한 환자 중, 4 인은 임의의 시기에 혈청 리스테리아를 나타내지 않았고 1 인은 2 일 째 매우 작은 양(35 cfu) 의 순환하는 리스테리아를 가졌고, 3 또는 5 일째에는 검출 가능한 리스테리아가 없었다.
환자 5는 초기 백신접종에 대하여 투여 후 48 시간에 걸쳐 경도의 발열로 반응하였고 항염증제로 치료되었다. 1 경우에, 발열은 중등도로 심해졌고(38.4℃를 넘은 적은 없음), 이후 그녀는 암피실린 치료를 받았으며, 이는 발열을 해결하였다. 항생제 투여 중에 그녀는 경도의 담마진을 경험하였고, 이는 항생제 투여 후 종결되었다. 혈액 배양물은 모두 멸균하고, 심장혈관 데이터는 다른 환자에게서 관찰된 범위 이내였고, 혈청 화학값은 정상으로, 이 환자는 리스테리아 질환이 없었음을 보여준다. 추가로, 아너지 패널은 1/3 기억 항원에 대하여 왕성한 반응을 나타내어, 기능적 면역의 존재를 나타낸다(다른 환자와 유사한). 환자 5는 이어서 부스트를 받은 후 다른 모든 환자와 유사한 반응을 입증하였다.
제2 집단 및 전체 안전성 관찰
두 집단에서, 간 기능 검사에 경미하고 일시적인 변화가 주입 이후 관찰되었다. 이들 변화는 임상을 모니터링하는 담당의에 의해 임상적 의미가 없는 것으로 결정되었고, 전신 순환으로부터 간 및 비장으로 신속하게 제거되는 박테리아의 단-수명 감염으로 예상되었다. 일반적으로, 위의 방법 항목에서 기술된 모든 안전성 지표는 순 변화가 없거나 거의 없음을 나타내어, 우수한 안전성 프로파일을 보여준다. 이 집단에서 부작용 프로파일은 처음의 집단에서 보여지는 것과 사실상 동일하였고 의원성 감염 유도의 결과로 일어나는 사이토카인 및 유사한 물질의 결과와 관련되는 용량 비의존성 일련의 증상으로 보였다. 혈청 리스테리아는 임의의 시기에 관찰되지 않았고 용량 제한 독성은 어느 집단에서도 관찰되지 않았다.
효능-제1 집단
다음 효능의 지표가 임상을 끝낸 제1 집단의 3 인의 환자에서 관찰되었다: (도 9)
환자 1은 각각 20 mm의 종양 2 개를 갖고 임상에 들어왔는데, 임상 과정에 걸쳐 18 및 14 mm로 줄어들어, 백신의 치료 효과를 나타낸다. 또한, 환자 1은 카르노프스키 수행 지수 70으로 임상에 들어왔는데, 이는 투약 후 90까지 올라갔다. 안전성 검토 패널 미팅에서, Department of Oncology, Institute for Oncology and Radiology, Belgrade, Serbia의 의장인  Radulovic은 임상을 수행하는 단체의 대표에 이 결과를 제시하였다; 단체의 컨설턴트로서 일하는 독립 종양학자인 Michael Kurman; Merck의 III 상 Gardasil 임상 및 Glaxo SmithKline의 Cervarix 임상을 수행한 Emory University의 학술 부인과 종양학자인 Kevin Ault; 및 NCI에서의 부인과 종양학 그룹의 설립자이고 University of Mississippi의 부인과 종양학 교수인 Tate Thigpen. Dr. Radulovic의 견해에서, 환자 1은 백신 처치로부터 임상적 혜택을 보여주었다.
사망하기 전, 환자 2는 1/2 종양 축소와 함께 복합 반응을 보여주었다.
환자 3은, 936 x 109/ml까지의 혈소판 수치의 증가를 포함하여, 부신생물 질환에 등록하였다(전반적인 약화 상태의 환자가 암에 버금가는 다른 후유증을 갖는 암의 부수현상). 수치는 첫 번째 투약 이후 대략 정상 수준인 405 x 109/ml까지 저하되었다.
환자 4는 각각 20 mm의 종양 2 개를 갖고 임상에 들어왔는데, 임상 과정에 걸쳐 18 및 14 mm로 줄어들어, 백신의 치료 효과를 나타낸다. 환자 4는 1.6 Kg의 체중 증가 및 첫 번째 및 두 번째 용량 사이에 대략 10%의 헤모글로빈 수치의 증가를 보였다.
효능-제2 집단 및 일반적 관찰
최저 용량 집단에서, 2 인의 환자가 종양의 축소를 보여주었다. 이 효과의 시기는 면역 반응의 발생에 시간순으로 뒤따른다는 점에서 면역학적 반응에서 관찰된 것과 일치하였다. 종양 부담에서 어느 정도까지 평가되었던 제2 집단에서 2 인의 환자 중 1 인이 백신접종-후 시점에서 극적인 종양 부하 감소를 보여주었다. 임상 개시에서, 이 환자는 13, 13, 및 14 mm의 3 개 종양을 가졌다. 2 용량의 백신 이후, 2 개의 종양은 9.4 및 12 mm까지 수축되었고, 세 번째는 더이상 검출 가능하지 않았다.
2 집단에서 종양 부하는 도 13b로 나타낸다. 요약하면, LM-LLO-E7의 비교적 낮은 용량조차, 프라이밍 주사 및 단일 부스트를 포함하는 치료 요법으로 투여시, 데이터를 수집한 6 인의 환자에서 3 개의 객관적 반응을 달성하였다.
논의
이러한 자궁경부암의 말기에서, 1 년 생존은 전형적으로 환자의 10-15%이고 어떠한 종양 요법도 효과적이지 않았다. 어떠한 치료도 단계 IVB 자궁경부암을 역전시키는 데 효과적으로 보이지 않았다. 이 단계의 자궁경부암 치료의 어려움에도 불구하고, 항-종양 효과가 2/6 환자에서 관찰되었다. 또한, 위에 기술된 바와 같이 임상을 끝낸 환자에서 다른 효능의 지표가 관찰되었다.
따라서, LM-LLO-E7은 인간 대상에 안전하고, 비교적 낮은 용량으로 투여시조차 자궁경부암 환자의 임상적 지표를 개선한다. 부스터 백신접종의 용량 및 회수를 증가시킬 때; 및/또는 항생제가 더 적은 용량으로 또는 주입 후 더 늦은 시점에 투여될 때, 추가의 긍정적 결과가 관찰될 것으로 보인다. 전-임상 연구에서는 한 자릿수의 용량 증가가 반응 비율에서 극적인 변화를 야기할 수 있음을 보여준다(예를 들어, 0% 반응 비율로부터 50-100% 완전 차도 비율로 변화. 추가의 부스터 용량은 또한 얻어지는 면역 반응을 추가로 향상시킬 것으로 보인다. 더욱이, 면역 시스템이 암을 계속 공격하므로 관찰된 치료적 면역 반응의 긍정적 효과는 추가 시간의 경과에도 계속될 것으로 보인다.
실시예
7:
약독화
리스테리아
균주-
LmddD
actA
의
제작 및
Lmdd
와
Lmdda
균주에서
프레임 내 인간
klk3
유전자의
hly
유전자로의 삽입.
재료 및 방법
재조합 Lm은 tLLO에 융합된 PSA를 분비하도록 개발되었는데(Lm-LLO-PSA), 이는 종양의 퇴행과 관련된 강력한 PSA-특이적 면역 반응을 전립선암에 대한 마우스 모델에서 유발하고, 여기에서 tLLO-PSA의 발현은 pGG55를 기반으로 하는 플라스미드로부터 유도되어(표 2) 벡터에 항생제 저항성을 부여한다. 본 발명자들은 최근 항생제 저항성 마커가 없는 pADV142 플라스미드 기반의 PSA 백신용 신규 균주를 개발하였으며, LmddA-142로 칭하였다(표 3). 이 신규 균주는 Lm-LLO-PSA보다 10 배 더 약독화되어 있다. 게다가, LmddA-142는 Lm-LLO-PSA보다 약간 더 면역원성이 있고 PSA 발현 종양의 퇴행에 있어 유의미하게 더 효과적이다.
표 2. 플라스미드 및 균주
| 플라스미드 | 특징 |
| pGG55 | 그람(-) 및 그람(+) cm 저항성, LLO-E7 발현 카세트 및 Lm prfA 유전자 카피를 갖는 pAM401/pGB354 셔틀 플라스미드 |
| pTV3 | cm 유전자 결실 및 Lm dal 유전자 삽입에 의해 pGG55로부터 유래됨 |
| pADV119 | prfA 유전자 결실에 의해 pTV3으로부터 유래됨 |
| pADV134 | Lm dal 유전자를 Bacillus dal 유전자로 교체함으로써 pADV119로부터 유래됨 |
| pADV142 | HPV16 e7을 klk3으로 교체함으로써 pADV134로부터 유래됨 |
| pADV168 | HPV16 e7을 hmw - maa 2160 -2258로 교체함으로써 pADV134로부터 유래됨 |
| 균주 | 유전자형 |
| 10403S | 야생형 리스테리아 모노사이토제네스:: str |
| XFL-7 | 10403S prfA (-) |
| Lmdd | 10403S dal (-) dat (-) |
| LmddA | 10403S dal (-) dat (-) actA (-) |
| LmddA -134 | 10403S dal (-) dat (-) actA (-) pADV134 |
| LmddA -142 | 10403S dal (-) dat (-) actA (-) pADV142 |
| Lmdd -143 | 염색체에서 hly 유전자에 융합된 klk3를 갖는 10403S dal (-) dat (-) |
| LmddA -143 | 염색체에서 hly 유전자에 융합된 klk3를 갖는 10403S dal (-) dat (-) actA (-) |
| LmddA -168 | 10403S dal (-) dat (-) actA (-) pADV168 |
|
Lmdd
-
143/134 |
Lmdd -143 pADV134 |
| LmddA -143/134 | LmddA -143 pADV134 |
|
Lmdd
-
143/168 |
Lmdd -143 pADV168 |
| LmddA -143/168 | LmddA -143 pADV168 |
플라스미드 pAdv142의 서열(6523 bp)은 다음과 같다:
aaaatctgtctcaggtgatgtagaactaacaaatatcatcaaaaattcttccttcaaagccgtaatttacggaggttccgcaaaagatgaagttcaaatcatcgacggcaacctcggagacttacgcgatattttgaaaaaaggcgctacttttaatcgagaaacaccaggagttcccattgcttatacaacaaacttcctaaaagacaatgaattagctgttattaaaaacaactcagaatatattgaaacaacttcaaaagcttatacagatggaaaaattaacatcgatcactctggaggatacgttgctcaattcaacatttcttgggatgaagtaaattatgatctcgagattgtgggaggctgggagtgcgagaagcattcccaaccctggcaggtgcttgtggcctctcgtggcagggcagtctgcggcggtgttctggtgcacccccagtgggtcctcacagctgcccactgcatcaggaacaaaagcgtgatcttgctgggtcggcacagcctgtttcatcctgaagacacaggccaggtatttcaggtcagccacagcttcccacacccgctctacgatatgagcctcctgaagaatcgattcctcaggccaggtgatgactccagccacgacctcatgctgctccgcctgtcagagcctgccgagctcacggatgctgtgaaggtcatggacctgcccacccaggagccagcactggggaccacctgctacgcctcaggctggggcagcattgaaccagaggagttcttgaccccaaagaaacttcagtgtgtggacctccatgttatttccaatgacgtgtgtgcgcaagttcaccctcagaaggtgaccaagttcatgctgtgtgctggacgctggacagggggcaaaagcacctgctcgggtgattctgggggcccacttgtctgttatggtgtgcttcaaggtatcacgtcatggggcagtgaaccatgtgccctgcccgaaaggccttccctgtacaccaaggtggtgcattaccggaagtggatcaaggacaccatcgtggccaacccccagcctttgctgtttctgcatcaccatgcccgtaggcgtttgctttcacaactgccatcaagtggacatgttcaccgatatgttttttcatattgctgacattttcctttatcgcggacaagtcaatttccgcccacgtatctctgtaaaaaggttttgtgctcatggaaaactcctctcttttttcagaaaatcccagtacgtaattaagtatttgagaattaattttatattgattaatactaagtttacccagttttcacctaaaaaacaaatgatgagataatagctccaaaggctaaagaggactataccaactatttgttaattaa(서열번호: 68). 이 플라스미드는 E. coli 균주로부터 Genewiz 시설에서 2-20-08에 서열결정되었다.
균주 Lm dal dat(Lmdd)는 독성 인자, ActA의 비가역적 결실에 의해 약독화되었다. Lmdaldat (Lmdd) 백그라운드에서 actA의 프레임내 결실은 하류(downstream) 유전자의 발현에 대한 임의의 극성 효과를 피하기 위해 구성되었다. Lm dal dat DactA은 ActA의 591 아미노산의 결실로 N-말단에 처음 19 개 아미노산 및 C-말단에 28 개 아미노산 잔기를 포함한다.
actA 결실 돌연변이체는 actA의 상류 (657 bp-올리고의 Adv 271/272) 및 하류 (625 bp- 올리고의 Adv 273/274) 부분에 해당하는 염색체 영역을 증폭하고 PCR로 결합시켜 생산되었다. 이러한 증폭에 사용된 프라이머의 서열을 표 1에 표시한다. actA의 상류 및 하류 DNA 영역을 pNEB193 내 EcoRI/PstI 제한 부위에서 클로닝하고, 이 플라스미드로부터 EcoRI/PstI를 온도-감응성 플라스미드 pKSV7에서 추가로 클로닝하여 ΔactA/pKSV7(pAdv120)를 얻었다.
표 1:
actA
의
상류 및 하류 DNA 서열의 증폭에 사용된
프라이머의
서열
| 프라이머 | 서열 | 서열번호: |
| Adv271-actAF1 | cg GAATTCGGATCCgcgccaaatcattggttgattg | 69 |
| Adv272-actAR1 | gcgaGTCGACgtcggggttaatcgtaatgcaattggc | 70 |
| Adv273-actAF2 | gcgaGTCGACccatacgacgttaattcttgcaatg | 71 |
| Adv274-actAR2 | gataCTGCAGGGATCCttcccttctcggtaatcagtcac | 72 |
이의 염색체 위치로부터 유전자의 결실을 도 10(a 및 b)에 프라이머 3(Adv 305-tgggatggccaagaaattc, 서열번호: 73) 및 프라이머 4(Adv304-ctaccatgtcttccgttgcttg; 서열번호: 74)로 도시되어 있는, actA 결실 영역에 외부적으로 결합하는 프라이머를 사용하여 확인하였다 PCR 분석은 Lmdd 및 LmddΔactA로부터 분리된 염색체 DNA에서 수행되었다. Lmdd 염색체 DNA에서 두 개의 상이한 세트의 프라이머 쌍 1/2 및 3/4로 증폭한 이후 DNA 단편의 크기는 3.0 Kb 및 3.4 Kb가 될 것으로 예상되었다. 반면, LmddΔactA에 대하여 프라이머 쌍 1/2 및 3/4를 사용한 PCR의 예상된 크기는 1.2 Kb 및 1.6 Kb였다. 따라서, 도 10(a 및 b)에서 PCR 분석은 actA의 1.8 kb 영역이 LmddΔactA 균주에서 결실되었음을 확인한다. DNA 서열결정은 균주에서 actA 포함 영역, LmddΔactA의 결실을 확인하기 위해 PCR 산물에서 또한 수행되었다.
실시예
8:
Lm
벡터에 의한 항원 전달용 항생제-
비의존성
에피솜
발현
시스템의 제작.
Lm 벡터(pAdv142)에 의한 항원 전달용 항생제-비의존성 에피솜 발현 시스템은 차세대 무항생제 플라스미드 pTV3이다(Verch 등, Infect Immun, 2004. 72(11):6418-25, 본원에 참조로 인용). 리스테리아 균주 Lmdd는 염색체에 prfA 유전자의 카피를 포함하기 때문에, 독성 유전자 전사 활성인자의 유전자, prfA가 pTV3로부터 결실되었다. 또한, NheI/PacI 제한 부위에서 p60-리스테리아 dal의 카세트를 p60-바실러스 서브틸리스 (Bacillus subtilis ) dal로 교체하여, 플라스미드 pAdv134를 얻었다(도 11a). 리스테리아와 바실러스 (Bacillus) dal 유전자의 유사성은 약 30%로, Lmdd 염색체에서 dal 유전자의 잔여 단편과 플라스미드 사이의 재조합 가능성은 사실상 제거된다. 플라스미드 pAdv134는 항원 발현 카세트 tLLO-E7를 포함하였다. LmddA 균주는 pADV134 플라스미드로 형질전환되고 선택된 클론으로부터 LLO-E7 단백질의 발현은 웨스턴 블로팅으로 확인되었다(도 11b). 10403S 야생형 균주 유래의 Lmdd 시스템은 Lmdd 스트렙토마이신 저항성을 제외하고는 항생제 저항성 마커가 결여된다.
또한, pAdv134을 XhoI/XmaI 제한효소로 처리해 인간 PSA, klk3를 클로닝하여, 플라스미드 pAdv142를 얻었다. 새로운 플라스미드 pAdv142(도 11c, 표 2)는 리 스테리아 p60 프로모터의 조절 하의 바실러스 dal (B-Dal)을 포함한다. 셔틀 플라스미드 pAdv142는 외인성 D-알라닌의 부재 중 리스테리아 모노사이토제네스 균주 Lmdd뿐 아니라 대장균(E. coli ) ala drx MB2159의 성장을 보완하였다. 플라스미드 pAdv142에서 항원 발현 카세트는 hly 프로모터 및 LLO-PSA 융합 단백질로 이루어진다(도 11c).
플라스미드 pAdv142는 리스테리아 백그라운드 균주, LmddactA 균주로 형질전환되어, Lm-ddA-LLO-PSA를 형성하였다. 균주 Lm-ddA-LLO-PSA에 의한 LLO-PSA 융합 단백질의 발현 및 분비는 항-LLO 및 항-PSA 항체를 사용하는 웨스턴 블로팅에 의해 확인되었다(도 11d). 2 회의 생체내 계대 후, 균주 Lm-ddA-LLO-PSA에 의한 LLO-PSA 융합 단백질은 안정적으로 발현 및 분비되었다.
실시예
9: 균주
LmddA
-
LLO
-PSA의
시험관내
및
생체내
안정성
8 일간 선택 압력(selective pressure)의 존재 또는 부재 중 LmddA-LLO-PSA 리스테리아 균주를 배양하여 플라스미드의 시험관내 안정성을 조사하였다. 균주 LmddA-LLO-PSA의 선택 압력은 D-알라닌이다. 따라서, 균주 LmddA-LLO-PSA는 뇌-심장 침출액(BHI) 및 BHI+ 100 μg/ml D-알라닌에서 계대배양되었다. 선택적(BHI) 및 비-선택적(BHI+D-알라닌) 배지에 접종 후, 매일 CFU을 결정하였다. 비-선택적 배지(BHI+D-알라닌)에 접종 후, 플라스미드의 손실은 더 높은 CFU를 야기할 것으로 예상되었다. 도 12a에 도시된 바와 같이, 선택적 및 비-선택적 배지에서 CFU 수에는 차이가 없었다. 이는 실험 종료시 플라스미드 pAdv142가 적어도 50 세대 동안 안정적일 것을 제시한다.
생체내 플라스미드 유지 보수는 C57BL/6 마우스에 5 x 10⁷ CFU LmddA-LLO-PSA를 정맥내 주사하여 결정되었다. 24 및 48 시간에 생존 박테리아를 PBS 중에 균질화된 비장으로부터 분리하였다. 각 샘플의 CFU를 BHI 플레이트 및 BHI + 100 mg/ml D-알라닌에서 각 시점에 결정하였다. 선택적 및 비-선택적 배지에 비장세포를 접종한 후 24 시간에 콜로니를 회수하였다. 이 균주는 매우 약독화되어, 박테리아 로드(load)가 24 시간만에 생체내에서 제거된다. 선택적 및 비-선택적 플레이트에서 CFU의 유의미한 차이는 검출되지 않았으며, 이는 모든 분리된 박테리아에서 재조합 플라스미드의 안정된 존재를 나타낸다(도 12b).
실시예
10:
생체내
계대시
, 균주
LmddA
-142(
LmddA
-
LLO
-PSA)의 독성 및 제거율
LmddA-142는 에피솜 형태로 발현된 tLLO-PSA 융합 단백질을 분비하는 재조합 리스테리아 균주이다. 안전한 투여량을 결정하기 위해, 마우스를 다양한 용량의 LmddA-LLO-PSA로 면역화하고 독성 효과를 결정하였다. LmddA-LLO-PSA는 최소 독성 효과를 야기하였다(데이터 미표시). 이 결과는 108 CFU 용량의 LmddA-LLO-PSA가 마우스에 잘 용인되는 것을 제시하였다. 독성 연구는 균주 LmddA-LLO-PSA가 크게 약독화되었음을 나타낸다.
안전한 투여량 108 CFU를 C57BL/6 마우스에 복강내 투여 후, LmddA-LLO-PSA의 생체내 제거율을 결정하였다. 2 일째 이후 LmddA-LLO-PSA로 면역화된 마우스의 간 및 비장 내에서는 검출 가능한 콜로니가 없었다. 이 균주는 크게 약독화되기 때문에, 48 시간에 생체내에서 완전히 제거되었다(도 13a).
LmddA-LLO-PSA의 약독화가 균주 LmddA-LLO-PSA의 마크로파아지 감염 및 세포내 성장 능력을 약화시키는지 결정하기 위해, 세포 감염 분석을 실시하였다. J774A.1와 같은 마우스 마크로파아지-유사 세포주를 시험관 내 리스테리아 구성체로 감염시켰고 세포내 성장을 정량하였다. 양성 대조 균주인 야생형 리스테리아 균주 10403S는 세포 내에서 성장하고, 음성 대조 XFL7, prfA 돌연변이체는 파고리소좀을 탈출할 수 없어서 J774 세포 내에서 성장하지 못한다. LmddA-LLO-PSA의 세포질내 성장은 이 균주의 세포에서 세포로 확산되는 능력의 손실로 인해 10403S보다 더 느리다(도 13b). 결과는 LmddA-LLO-PSA가 마크로파아지 감염 및 세포질내 성장 능력을 갖는 것을 보여준다.
실시예
11:
C57BL
/6 마우스에서 균주-
LmddA
-
LLO
-PSA의 면역원성
C57BL/6 마우스에서 구성체 LmddA-LLO-PSA에 의해 유발된 PSA-특이적 면역 반응을 PSA 4합체 염색을 사용하여 결정하였다. 마우스를 1 주 간격으로 2 회 LmddA-LLO-PSA로 면역화하고 부스트 이후 6 일째에 비장세포를 PSA 4합체로 염색하였다. PSA-특이적 4합체로 비장세포를 염색한 결과 LmddA-LLO-PSA가 23%의 PSA 4합체+CD8+CD62Llow 세포를 유발하였음을 보여주었다(도 14a). 5 시간 동안 PSA 펩티드로 자극 후 IFN-γ를 분비하는 PSA-특이적 T 세포의 기능적 능력을 세포내 사이토카인 염색을 사용하여 검사하였다. 미처리 마우스와 비교하여 LmddA-LLO-PSA 군에서는 PSA 펩티드로 자극된 CD8+CD62LlowIFN-γ 분비 세포의 백분율이 200배 증가하였으며(도 14b), 이는 LmddA-LLO-PSA 균주가 매우 면역원성이며 비장에서 PSA에 대해 높은 수준의 기능적으로 활성화된 PSA CD8+ T 세포 반응을 갖추고 있음을 나타낸다.
마우스를 LmddA-LLO-PSA로 면역화한 후 PSA에 대하여 생성된 세포독성 T 세포의 기능적 활성을 결정하기 위해, 본 발명자들은 시험관내 분석에서 H-2Db 펩티드로 펄스 자극된 EL4 세포를 용해하는 PSA-특이적 CTL의 능력을 검정하였다. 세포 용해를 측정하기 위해 FACS-기반의 카스파제 분석(도 14c) 및 유로퓸(Europium) 방출(도 14d)을 사용하였다. LmddA-LLO-PSA로 면역화된 마우스의 비장세포는 표적 항원으로서 PSA 펩티드를 제시하는 세포에 대해 높은 세포 용해 활성을 갖는 CTL을 포함하였다.
항원으로 24 시간 자극 후 IFN-γ를 분비하는 주효 T 세포의 기능적 능력을 결정하기 위해 엘라이스팟(Elispot)을 시행하였다. ELISpot을 사용하여, 미처리 마우스의 비장세포와 비교시 특이적 펩티드로 자극된 LmddA-LLO-PSA로 면역화된 마우스로부터의 비장세포에서 IFN-γ에 대한 스팟의 수에서 20-배 증가가 관찰되었다(도 14e).
실시예
12:
LmddA
-
142균주로의
면역화는 PSA를 발현하는 종양의 퇴행 및
PSA-특이적
CTL에
의한 종양의 침윤을 유도한다.
구성체 LmddA-142 (LmddA-LLO-PSA)의 치료적 효능은 PSA를 발현하도록 조작된 전립선 선암 세포주를 사용하여 결정하였다(Tramp-C1-PSA (TPSA); Shahabi 등, 2008). 마우스에 2 x 10⁶ TPSA 세포를 피하 이식하였다. 종양이 4-6 mm의 감지할 수 있는 크기가 되었을 때, 종양 접종 후 6 일째에 마우스를 108 CFU LmddA-142 및 107 CFU CFU Lm-LLO-PSA(양성 대조군)로 1 주일 간격으로 3 회 면역화하거나, 미처리하였다. 상기 미처리 마우스에서는 서서히 종양이 발생하였다(도 15a). LmddA-142로 면역화된 마우스는 35 일째까지는 모두 종양이 없었고 8 마리 중 3 마리에서 점차 종양이 발생하였고, 이들은 미처리 마우스에 비해 훨씬 느린 속도로 성장하였다(도 15b). 8 마리 마우스 중 5 마리는 70 일째까지 종양 없이 유지되었다. 예상된 바와 같이, Lm-LLO-PSA-백신접종된 마우스에서는 미처리 대조군보다 종양이 적게 나타나며 대조군보다 종양이 더 느리게 발생하였다(도 15c). 따라서, 구성체 LmddA-LLO-PSA는 TPSA 세포주에 의해 확립된 종양의 60%를 퇴행시키고 다른 마우스에서는 종양의 성장을 지연시킬 수 있었다. 68 일째에 종양이 없는 치유된 마우스를 TPSA 종양으로 재공격하였다.
LmddA-142로의 마우스의 면역화는 성장을 조절하고, 미처리 군에서는 전혀 없는 것과 비교하여(도 15a), 60% 보다 많은 실험 동물에서 PSA를 발현하도록 조작된 7-일 확립된 Tramp-C1 종양의 퇴행을 유도할 수 있다(도 15b). LmddA-142는 고도로 약독화된 벡터(LmddA) 및 플라스미드 pADV142를 사용하여 제작하였다(표 2).
또한, LmddA-LLO-PSA 구성체에 의해 생성된 PSA-특이적 CD8 림프구의 종양 침윤 능력을 조사하였다. 마우스에 종양 및 마트리겔의 혼합물을 피하 이식한 후, 7 일 간격으로 미처리 또는 대조(Lm-LLO-E7) 리스테리아, 또는 LmddA-LLO-PSA로 2 회 면역화하였다. 21 일째에 종양을 절제하고, 종양 내로 침윤하는 CD8+CD62Llow PSA4합체+ 및 CD4+ CD25+FoxP3+ 조절 T 세포의 집단(population)을 대상으로 분석하였다.
미처리 및 Lm-LLO-E7 대조 면역화된 마우스 둘 다에 존재하는, PSA에 특이적인 매우 적은 수의 CD8+CD62Llow PSA4합체 + 종양 침윤 림프구(TIL)가 관찰되었다. 그러나, LmddA-LLO-PSA로 면역화된 마우스에서 PSA-특이적 CD8+CD62Llow PSA4합체 + TIL의 백분율에서 10-30-배 증가가 있었다(도 7a). 흥미롭게도, 비장에서 CD8+CD62Llow PSA4합체+ 세포의 집단은 종양에서보다 7.5 배 더 낮았다(도 16a).
또한, 미처리된 마우스 및 리스테리아 면역화된 마우스의 종양에서 CD4+/CD25+/Foxp3+ T 조절 세포(reg)의 존재를 결정하였다. 흥미롭게도, 리스테리아로의 면역화는 종양에서 CD4+ CD25+FoxP3+ T-reg의 수에 상당한 감소를 야기하지만, 비장에서는 그렇지 않았다(도 16b). 그러나, 구성체 LmddA-LLO-PSA는 미처리 및 Lm-LLO-E7로 면역화된 군과 비교할 때 종양에서 CD4+ CD25+FoxP3+ T-reg 의 빈도 감소에 더 강한 영향을 가졌다(도 16b).
그러므로, LmddA-142 백신은 종양 부위로 침윤할 수 있는 PSA-특이적 CD8+ T 세포를 유도할 수 있다(도 16a). 흥미롭게도, LmddA-142로의 면역화는 종양에서 조절 T 세포수의 감소와 관련되어 있으며(도 16b), 아마도 효과적인 항-종양 CTL 활성을 위해 더욱 유리한 환경을 조성하였다.
실시예
13:
Lmdd
-143 및
LmddA
-143은 PSA
융합에도 불구하고
기능적
LLO를
분비한다.
Lmdd-143 및 LmddA-143은 전장 인간 klk3 유전자를 포함하는데, 이는 염색체에서 hly 유전자와 함께 하류 그리고 프레임 내 상동성 재조합에 의해 삽입되는 PSA 단백질을 암호화한다. 이들 구성체는 hly - klk3 - mpl 재조합 카세트를 전달하는, 온도-감응성 레플리콘(replicon)을 갖는 pKSV7 플라스미드(Smith and Youngman, Biochimie. 1992; 74 (7-8) p705-711)를 사용하여 상동성 재조합으로 만들어졌다. 두 번째 재조합 후 플라스미드 절단 때문에, 통합 선택을 위해 사용된 항생제 저항성 마커가 손실된다. 또한, actA 유전자가 LmddA-143 균주에서 결실된다(도 17a). 염색체로 hly와 함께 프레임 내 klk3의 삽입은 두 구성체에서 PCR(도 17b) 및 서열분석(데이터 미표시)에 의해 확인되었다.
이들 염색체 구성체의 중요한 일 양태는 LLO-PSA 생산이 LLO의 기능을 완전히 파괴하지는 않을 것이라는 점으로, 이는 파고좀으로부터 리스테리아의 탈출, 세포질 침입 및 L. 모노사이토제네스에 의해 생성된 효율적인 면역성을 위해 요구된다. Lmdd-143 및 LmddA-143 배양 상등액에서 분비된 단백질의 웨스턴-블롯 분석으로 LLO-PSA 융합 단백질에 해당하는 ~81 kDa 밴드 및 LLO의 예상 크기인 ~60 kDa 밴드를 확인하였으며(도 18a), 이는 염색체 내 융합 유전자에도 불구하고 LLO가 LLO-PSA 융합체로부터 절단되거나 여전히 L. 모노사이토제네스에 의한 단일 단백질로서 생산됨을 나타낸다. Lmdd-143 및 LmddA-143에 의해 분비되는 LLO는 야생형 L. 모노사이토제네스 10403S과 비교해서 50%의 용혈 활성을 유지하였다(도 18b). 이들 결과와 일치하여, Lmdd-143 및 LmddA-143 둘 다 마크로파아지-유사 J774 세포주에서 세포내 복제할 수 있었다(도 18c).
실시예
14:
Lmdd
-143 및
LmddA
-143 둘 다 PSA 항원에 대하여 세포-매개
면역 반응을 유발한다.
Lmdd-143 및 LmddA-143 둘 다 LLO에 융합된 PSA를 분비할 수 있음을 보여준 후, 이들 균주가 생체내 PSA-특이적 면역 반응을 유발할 수 있는지의 의문을 조사하였다. C57Bl/6 마우스는 미처리 상태로 두거나 Lmdd-143, LmddA-143 또는 LmddA-142로 2 회 면역화하였다. PSA-특이적 CD8+ T 세포 반응을 PSA65 -74 펩티드에 의한 비장세포 자극 및 IFN-γ에 대한 세포내 염색에 의해 측정하였다. 도 19에 도시된 바와 같이, 염색체 및 플라스미드-기반의 벡터에 의해 유도된 면역 반응은 유사하다.
재료 및 방법(실시예 15 내지 19)
MDSC
및Treg
기능
종양은 종양 모델에 따라 측면 또는 생리학적 위치에서 마우스에 이식되었다. 7 일 후, 마우스를 백신접종하는데, 초기 백신접종 날짜는 사용된 종양 모델에 의존한다. 다음에 마우스에는 백신이 주어진 1 주일 후 부스터 백신이 투여되었다.
마우스를 다음에 희생시키고 종양 및 비장은 부스트 1 주일 후, 또는 침습성 종양 모델의 경우 부스트 3 내지 4 일 후 수확하였다. 종양 수확 5 일 전, 종양을 포함하지 않는 마우스는 응답 T 세포로 사용하기 위해 백신접종하였다. 비장세포는 표준 방법을 이용하여 제조하였다.
요약하면, 종양 및 비장 둘 다의 단일세포 현탁액을 제조하였다. 비장은 수동으로 분쇄하고 적혈구는 용해하였다. 종양은 갈아서 콜라게나아제/DNA 가수분해효소와 함께 배양하였다. 대안적으로, GENTLEMACSTM 분리기가 종양 분리 키트와 함께 사용되었다.
MDSC 또는 Treg는 Miltenyi 키트 및 컬럼 또는 autoMACs 분리기를 사용하여 종양 및 비장으로부터 정제되었다. 세포는 그 다음에 카운팅되었다.
단일 세포 현탁액을 제조하고 적혈구는 용해하였다. 응답 T 세포를 다음에 CFSE로 표지하였다.
세포를 96 웰 플레이트에서 웰당 1x10⁵ T 세포의 밀도로 2:1 비율의 응답 T 세포(모든 분열 주기 단계로부터) 대 MDSC 또는 Treg를 함께 플레이팅하였다. 응답 T 세포는 다음에 적절한 펩티드(PSA 또는 CA9)로, 또는 PMA/이오노마이신으로 비-특이적으로 자극되었다. 세포를 5% CO2와 함께 37℃에서 2 일 동안 암소에서 배양하였다. 2 일 후, 세포를 FACS 염색하고 FACS 기기에서 분석하였다.
T-세포 반응의 분석
ELISA에 의한 사이토카인 분석을 위해, 비장세포를 수확하고 배지, SEA 또는 conA(양성 대조군으로서)의 존재 중 48-웰 플레이트에서 웰 당 150 만개 세포로 플레이팅하였다. 72 시간 동안 배양 후, 상등액을 수확하고 ELISA(BD)에 의하여 사이토카인 수준을 분석하였다. 항원-특이적 IFN-γ ELISpot을 위해, 비장세포를 수확하고 배지, 특이적 CTL 펩티드, 비관련 펩티드, 특이적 헬퍼 펩티드 또는 conA(양성 대조군으로서)의 존재 중 IFN-γ ELISpot 플레이트에 웰당 300K 및 150K 세포로 플레이팅하였다. 20 시간 동안 배양 후, ELISpot(BD)을 수행하고 스폿은 면역스폿 분석기(C.T.L.)에 의하여 계산되었다. 100 만 비장세포당 스폿의 수를 그래프화하였다.
비장세포는 Coulter 계수기, Z1을 사용하여 계산하였다. gag-CTL, gag-헬퍼, 배지, 비관련 항원, 및 con A(양성 대조군)로 재-자극 후 CD8+ T 세포를 생산하는 IFN-γ의 빈도를 표준 IFN-γ-기반 ELISPOT 분석을 사용하여 결정하였다.
요약하면, IFN-γ를 5 mg/ml의 mAb R46-A2 및 최적 희석에서 사용되는 다클론 토끼 항-IFN-γ을 사용하여 검출하였다(Dr. Phillip Scott, University of Pennsylvania, Philadelphia, PA 제공). IFN-γ의 수준은 쥣과 rIFN-γ(Life Technologies, Gaithersburg, MD)을 사용하여 표준 곡선과 비교함으로써 계산되었다. 플레이트는 퍼록시다아제-공액 염소 항-토끼 IgG Ab(IFN-γ)을 이용하여 전개되었다. 플레이트는 그 후 405 nm에서 판독하였다. 분석에 대한 검출의 하한치는 30 pg/ml이었다.
실시예 15:
리스테리아
백신 처리 후 억제 세포 기능
0 일째에 종양을 마우스에 이식하였다. 7 일째 마우스를 Lmdda-E7 또는 LmddA-PSA로 백신접종하였다. 14 일째 종양을 수확하고 침윤 MDSC 및 Treg의 수 및 백분율을 백신접종 및 미처리 그룹에 대해 측정하였다. 리스테리아-처치된 마우스의 종양에서 MDSC 및 Treg 둘 다의 백분율 및 MDSC의 절대값에서 감소가 있는 반면, 비장 또는 배출 림프절(TLDN)에서는 동일한 효과가 관찰되지 않은 것이 발견되었다(도 20).
위의 실험에서 종양 포함 마우스로부터 추출된 단리된 비장세포 및 종양-침윤 림프구(TIL)는 풀링되고 종양에서 MDSC 및 Treg(비장 및 종양의 MDSC 및 Treg 둘 다)의 존재에 대한 Lm-LLO-E7, Lm-LLO-PSA 및 Lm-LLO-CA9, Lm-LLO-Her2(도 21-23)로의 면역화의 효과를 규명하기 위해 CD3, 및 CD8에 대해 염색되었다. 각 컬럼은 특정 세포 분열 단계에서 T 세포 집단의 %을 나타내고 특정 처리 그룹(미처리, 펩티드-CA9 또는 PSA-처리, MDSC/Treg 없음, 및 MDSC 없음 + PMA/이오노마이신) 하에 서브그룹화 된다 (도 21-23).
종양-포함 마우스로부터의 혈액을 Treg 및 MDSC 존재의 백분율에 대해 분석하였다. Lm 백신접종 이후 마우스의 혈액에서 MDSC 및 Treg 둘 다의 감소가 있다.
실시예
16: 비장이 아닌
TPSA23
종양에서의
MDSC는
리스테리아
백신접종 후
덜
억제성이다
.
억제 분석은 비-특이적으로 활성화된 미처리 뮤린 세포, 및 특이적으로 활성화된 세포(PSA, CA9, PMA/이오노마이신)와 함께 TPSA23 종양으로부터 단리된 단핵구 및 과립구 MDSC을 사용하여 수행되었다. 결과는 Lm 백신접종된 그룹에서 종양으로부터 단리된 MDSC가 미처리 마우스의 종양으로부터의 MDSC와 비교하여 활성화된 T 세포의 분열을 억제하는 능력이 감소된 것을 나타냈다. (도 21 및 23에서 Lm-LLO-PSA 및 Lm-LLO-처리 그룹 참조, 도면에서 우측 패널은 좌측 패널로부터 풀링된 세포 분열 데이터를 나타냄). 또한, MDSC가 존재하지 않고 세포가 비자극/활성화된 비처리 마우스로부터의 T 응답 세포는 모체(휴지) 단계로 남아있고(도 21 및 23), 반면 PMA 또는 이오노마이신으로 자극된 T 세포는 복제된 것이 관찰되었다(도 21 및 23). 또한, Gr+Ly6G+ 및 GrdimLy6G-MDSC 둘 다 리스테리아 처리 후 덜 억제성인 것이 관찰되었다. 이것은 활성화된 PSA-특이적 T 세포 및 비-특이적(PMA/이오노마이신 자극) T 세포의 분열을 둘 다 억제하는 그들의 능력의 저하에 적용된다.
또한, 비-특이적으로 활성화된 미처리 뮤린 세포와 함께 TPSA23 종양으로부터 단리된 MDSC를 사용하여 수행된 억제 분석은 Lm 백신접종된 그룹에서 종양으로부터 단리된 MDSC가 미처리 마우스의 종양으로부터의 MDSC와 비교하여 활성화된 T 세포의 분열을 억제하는 능력의 감소가 있음을 나타냈다(도 21 및 23).
또한, 도 21 및 27과 관련하여 바로 위에 논의된 관찰은 비장의 MDSC를 사용한 때에는 관찰되지 않았다. 이후, 미처리 그룹, 리스테리아-처리 그룹(PSA, CA9), 및 PMA/이오노마이신 자극 그룹(양성 대조군)으로부터의 비장세포/T 세포는 모두 동일한 수준의 복제를 나타내었다(도 22 및 24). 따라서, 이들 결과는 종양에서 억제 세포의 리스테리아-매개 저해가 항원-특이적 및 비-특이적 방식으로 작동된 반면, 리스테리아는 비장의 과립구 MDSC에 대하여 효과가 없는 것을 보여주는데, 이들은 항원-특이적 방식으로만 억제하기 때문이다.
실시예 17: 종양 T 조절 세포의 감소된 억제
억제 분석은 리스테리아 처리 후 TPSA23 종양으로부터 단리된 Treg를 사용하여 수행되었다. 리스테리아로 처리한 후 종양으로부터의 Treg의 억제 능력에 감소가 있음이 관찰되었으나(도 25), 비장의 Treg는 여전히 억제성임이 발견되었다(도 26).
대조군으로서 통상의 CD4+ T 세포가 MDSC 또는 Treg 대신 사용되었고 세포 분열에 영향을 주지 않은 것이 발견되었다(도 27).
실시예
18:
비장이 아닌 4t1 종양으로부터의
MDSC
및
Treg는
리스테리아
백신접종 후 덜
억제성이다
.
위에서와 같이, 동일한 실험이 4T1 종양을 사용하여 수행되었으며 동일한 관찰, 즉 MDSC가 리스테리아 백신접종 후 덜 억제성인 것(도 28 및 30), 리스테리아는 비장의 단핵구 MDSC에 대한 특이적 영향이 없다는 것(도 29 및 31), 리스테리아 백신접종 후 4T1 종양으로부터의 Treg의 억제 능력에서 감소가 있다는 것(도 32), 그리고 리스테리아는 비장 Treg의 억제 능력에 대한 영향이 없다는 것(도 33)이 얻어졌다.
최종적으로, 리스테리아는 비장 Treg의 억제 능력에 대한 영향이 없다는 것이 관찰되었다.
실시예
19:
과립구 및 단핵구
MDSC의
억제 능력의 변화는
tLLO의
과발현에 기인한다.
LLO 플라스미드는 TAA 또는 비관련 항원 중 하나와 함께 리스테리아 백신과 유사한 결과를 나타낸다(도 34). 이것은 과립구 MDSC의 억제 능력에서의 변화가 tLLO의 과발현에 기인하고 파트너링하는 융합 항원과 무관하다는 것을 의미한다. 빈 플라스미드 구성체 단독으로도, 플라스미드에 절단된 LLO를 포함하는 임의의 백신과 완전히 동일한 수준은 아니지만, MDSC의 억제 능력에서의 변화를 유도한다. 3 개의 독립적인 실험의 평균은 빈 플라스미드와 tLLO를 갖는 다른 플라스미드(종양 항원이 있거나 및 없음) 사이에 억제에서의 차이가 유의미함을 보여준다. MDSC 억제 능력에서의 감소는 항원 특이적 또는 비-특이적 자극된 응답 T 세포가 사용된 사실에 관계 없이 동일하였다.
과립구 MDSC와 유사하게, 3 개의 독립적인 실험의 평균은 Lm이 없는 플라스미드 백신으로 백신접종 후 종양으로부터 정제된 단핵구 MDSC의 억제 능력에서 관찰된 차이점이 다른 백신 구성체와 비교시 유의미함을 보여준다(도 35).
위의 관찰과 유사하게, 비장으로부터 정제된 과립구 MDSC는 Lm 백신접종 후 항원-특이적 응답 T 세포의 분열을 억제하는 그들의 능력을 유지한다(도 36). 그러나, 비-특이적 자극 후, 활성화된 T 세포(PMA/이오노마이신으로)는 여전히 분열할 수 있다. 이들 결과의 어느 것도 LLO 단독 또는 빈 플라스미드 백신의 사용으로 변경되지 않아, Lm-기반의 백신이 비장의 과립구 MDSC에 영향을 주지 않음을 보여준다(도 35).
유사하게, 비장으로부터 정제된 단핵구 MDSC는 Lm 백신접종 후 항원-특이적 응답 T 세포의 분열을 억제하는 그들의 능력을 유지한다. 그러나, 비-특이적 활성화(PMA/이오노마이신으로 자극됨) 후, T 세포는 여전히 분열할 수 있다. 이들 결과의 어느 것도 LLO 단독 또는 빈 플라스미드 백신의 사용으로 변경되지 않아, Lm 백신은 비장의 단핵구 MDSC에 영향을 주지 않음을 보여준다(도 37).
임의의 Lm-처치 그룹의 종양으로부터 정제된 Treg는 응답 세포가 항원 특이적 또는 비-특이적으로 활성화되는지 여부와 무관하게, 응답 T 세포의 분열을 억제하는 능력이 약간 감소된다. 특히 비-특이적으로 활성화된 응답 T 세포에서는, 빈 플라스미드를 갖는 백신이 플라스미드에 LLO를 포함하는 모든 백신과 같은 결과를 보이는 것처럼 보인다. 다른 것들과 함께 이러한 실험의 평균은 차이가 유의미하지 않음을 보여준다(도 38).
비장으로부터 정제된 Treg는 항원 특이적 및 비-특이적으로 활성화된 응답 T 세포 둘 다의 분열을 여전히 억제할 수 있다. 비장 Treg의 억제 능력에 대하여 Lm 처리는 효과가 없다(도 39).
Tcon 세포는 응답 세포가 항원 특이적 또는 비-특이적으로 활성화되는지 여부와 무관하게 T 세포의 분열을 억제할 수 없는데, 이는 이들 세포가 비-억제성이라는 사실과 일치한다. Lm은 이들 세포에 영향을 주지 않으며 세포가 마우스의 비장 또는 종양으로부터 정제된 경우 차이가 없었다(도 40-41).
실시예
20: 항-OX40 또는 항-
GITR
Ab와의
조합
리스테리아
-기반
백신이 투여된 마우스에서
증가된
생존
재료 및 방법
동물, 세포주, 백신 및 기타 시약
6 내지 8 주령의 암컷 C57BL6 마우스를 Jackson Laboratories로부터 구입하여 무-병원체 조건 하에 보관하였다. 마우스를 NIH 지침에 따라 GRU 동물 케어 및 사용 위원회(Animal Care and Use Committee)의 승인을 받은 프로토콜 하에서 관리하였다. 인간 유두종 바이러스 균주 16(HPV16) 초기 단백질 6 및 7(E6 및 E7)과 활성화된 ras 종양 유전자의 1차 C57BL/6 마우스 폐 상피 세포로의 공동-형질감염에 의해 유래된 TC-1 세포를 ATCC (Manassas, VA)로부터 입수하고, 세포를 10% FBS, 페니실린 및 스트렙토마이신(각 100 U/ml) 및 L-글루타민(2 mM)으로 보충된 RPMI 1640 중 37℃에서 5% CO2와 함께 성장시켰다. Advaxis Inc.에서 제공한 인간 유두종 바이러스-16(HPV-16) E7(Lm-LLO-E7, LmddA-LLO 및 XFL7)이 있거나 없는 리스테리아 백신 벡터를 위 실시예 1에 기술되고 위에 구체적인 설명에서 개시된 것과 같이 생성하였다.
Lm-LLO-E7, LmddA-LLO 및 XFL7은 복강내(i.p.) 1x10⁸ CFU/마우스 용량으로 주사하였다. GITR 및 OX40 항체는 Astra Zeneca / Medimmune으로부터 입수하였고, 도 42a 및 도 42b에 나타낸 바와 같이 정맥내(i.v.) 50 μg/마우스(항-OX40Ab의 경우) 및 250 μg/마우스(항-GITR Ab의 경우) 용량으로 주사하였다.
종양 이식 및 처치
종양 성장 및 생존을 분석하기 위한 치료적 실험을 다음과 같이 수행하였다. 간단하게는, 마우스에 70,000 TC-1 종양 세포/마우스를 0 일째 우측 옆구리에 피하 이식하였다. 10 일째(종양 크기 ~4-5 mm 직경), 적절한 그룹의 마우스(그룹 당 10 마리 마우스)에 Lm-LLO-E7, LmddA-LLO 및 XFL7를 항-GITR Ab 또는 항-OX40 Ab와 함께 또는 없이 i.p. 주사하거나 비-처치(NT)로 두었다. (도 42c) 항-OX40 Ab를 받는 마우스를 백신 및 항-OX40 Ab로 주 2 회 실험 기간 동안 처치하였다(도 42, 10 일째, 13 일째, 17 일째, 20 일째 등). 항-GITR Ab를 받는 마우스를 주 2 회 총 3 용량으로 처치하였다(도 42b, 10 일째, 13 일째 및 17 일째). 다른 마우스 그룹은 처리하지 않은 채로 두었다.
결과
도 43a-b는 리스테리아-기반 백신 ADXS11-001 단독 투여가 처치된 마우스의 생존을 비-처치 또는 대조 처치 마우스의 적어도 2 배만큼 연장시킨 한편, ADXS11-001의 처치 및 항-GITR Ab의 투여의 조합은 집단 내에서 생존 시간뿐 아니라 생존 백분율을 증가시킨 것을 보여준다. 증가 백분율은 거의 40%였다. ADXS11-001과 항-GITR Ab의 조합은 처치된 마우스의 60%에서 확립된 종양의 완전한 퇴행을 유도하였다(도 43a). 흥미롭게도, 항-GITR 항체는 또한 LmddA-LLO만 받은 마우스와 비교하여 LmddA-LLO/항-GITR 처치된 마우스에서 생존 시간의 증가를 보여주었다(도 43b).
도 44a-b는 리스테리아-기반 백신 ADXS11-001 단독 투여가 처치된 마우스의 생존을 비-처치 또는 대조 처치 마우스의 적어도 2 배만큼 연장시킨 한편, ADXS11-001의 처치 및 항-OX40 Ab의 투여의 조합은 집단 내에서 생존 시간뿐 아니라 생존 백분율을 증가시킨 것을 보여준다(도 44b). 증가 백분율은 거의 20%였다. 따라서, ADXS11-001과 항-OX40 Ab의 조합은 처치된 마우스의 40%에서 확립된 종양의 완전한 퇴행을 유도하였다(도 44a).
이들 결과는 항-OX40 및 항-GITR 항체의 사용이 리스테리아-기반 백신의 치료적 효능을 증진시킨 것을 보여준다.
실시예
21:
공동-자극 분자
GITR
및 OX40에 대한
효능제
항체의 사용은
리스테리아
-기반 면역요법의 항-종양 효능을 증진시킨다
효능제 항체 항-OX40 및 항-GITR이 리스테리아-기반 백신의 치료적 효능을 증진시키는 것을 보여주는 실시예 20에 제시된 결과에 따라, 이러한 증진된 생존에 대한 면역 반응을 분석하였다.
재료 및 방법
동물, 세포주, 백신 및 기타 시약 6 내지 8 주령의 암컷 C57BL6 마우스를 Jackson Laboratories로부터 구입하여 무-병원체 조건 하에 보관하였다. 마우스를 NIH 지침에 따라 GRU 동물 케어 및 사용 위원회(Animal Care and Use Committee)의 승인을 받은 프로토콜 하에서 관리하였다. 인간 유두종 바이러스 균주 16(HPV16) 초기 단백질 6 및 7(E6 및 E7)과 활성화된 ras 종양 유전자의 1차 C57BL/6 마우스 폐 상피 세포로의 공동-형질감염에 의해 유래된 TC-1 세포를 ATCC (Manassas, VA)로부터 입수하고, 세포를 10% FBS, 페니실린 및 스트렙토마이신(각 100 U/ml) 및 L-글루타민(2 mM)으로 보충된 RPMI 1640 중 37℃에서 5% CO2와 함께 성장시켰다. Advaxis Inc.에서 제공한 인간 유두종 바이러스-16( HPV -16) E7, Lm [XFL7], Lm-LLO [LmddA-LLO], Lm-LLO-E7 [ADXS11-001])가 있거나 없는 리스테리아 백신 벡터를 위 실시예 1에 기술되고 위에 구체적인 설명에서 개시된 것과 같이 생성하였다. 리스테리아-기반 요법은 표 3에 대조와 함께 나타낸다.
표 3
| 명명 | 리스테리아 균주의 설명 |
| LM | XFL7 |
| Lm-LLO | LmddA-LLO |
| Lm-LLO-E7 | ADXS11-001 |
Lm, LM-LLO 및 Lm-LLO-E7을 1x10⁸ CFU/마우스 용량으로 D13 일에 시작하여 매 7 일마다 복강내(i.p.) 주사하였다(도 45 및 도 51a). GITR 및 OX40 항체를 Astra Zeneca / Medimmune으로부터 입수하고, 도 45, 도 51에 나타낸 바와 같이 정맥내(i.v.) 주사하였다.
종양 이식 및 처치
치료적 실험에서 종양 성장 및 면역 반응을 분석하고 다음과 같이 수행하였다. 간단하게는, 마우스에 70,000 TC-1 종양 세포/마우스를 0 일째 우측 옆구리에 피하(s.c.) 이식하였다. 13 일째(종양 크기 ~4-5 mm 직경), 적절한 그룹의 동물(그룹 당 5 마리 마우스)에 LM, LM-LLO 또는 Lm-LLO-E7을 항-GITR Ab(도 45; 표 4) 또는 항-OX40 Ab(도 51; 표 5)와 함께 또는 없이 i.p. 주사하거나 비-처치(NT)로 두었다. 항-OX40 Ab를 받는 마우스를 제13 일(D13)에 시작하여 3-4 일 간격으로 백신 및 항-OX40 Ab를 총 4 용량의 1 mg/Kg 마우스 체중(mpk)으로 처치하였다(도 51). 항-GITR Ab를 받는 마우스를 제13 일(D13)에 시작하여 3-4 일 간격으로 백신 및 항-GITR Ab를 총 4 용량의 5 mg/Kg 마우스 체중(mpk)으로 처치하였다(도 45). 다른 그룹의 마우스는 효능제 항체로 처치하지 않고 두었다(PBS 열, 도 42c에 기술됨).
서브셋의 마우스에서는, 디지털 캘리퍼를 사용하여 종양을 3-4 일마다 측정하고, 종양 용적을 식 V=(W2×L)/2을 사용하여 계산하였는데, 여기에서 V는 용적, L은 길이(긴 직경)이며, W는 폭(짧은 직경)이다. 이들 실험에서 마우스는 빈사 상태가 되거나, 종양이 궤양화되거나 종양 용적이 1.5 ㎤에 도달하였을 때 희생시킬 것이다.
모두 합해서 8 개 시험 그룹이 있었다. 26 일째(D26) 모든 동물을 치사시켜 비장과 종양을 수확하고 침윤성 총 CD4, Treg(CD4+FoxP3+), 비 Treg(CD4+FOXP3-), CD8+, CD8+E7+, 골수 유래 억제 세포(MDSC), CD8+/Treg, CD8+E7+/Treg, CD8+/MDSC, CD8+E7+/MDSC를 스크리닝하였다.
말초 및 종양에서 항원-특이적 세포 면역 반응(
ASIR
),
Treg
,
MDSC의
분석
제조자(BD Biosciences, San Jose, CA)의 제안에 따라, ELISPOT을 사용하여, 처리된 마우스 및 대조군 마우스로부터 E7-재자극(10 μg/ml) 비장세포 배양물 중의 IFNγ 생산을 검출하였다. 스폿 분석을 위해 CTL Immunospot Analyzer(Cellular Technology Ltd., Shaker Heights, OH)가 사용될 것이다. 비관련 펩티드(hgp 10025-33- KVPRNQDWL-Celtek Bioscience, Nashville, TN) 재자극된 비장세포로부터의 스폿의 개수를 E7-재자극된 배양물로부터 뺐다. 또한, 종양 내 ASIR은 도 48b 및 54b에 항원-특이적 종양-침윤성 CD8+ T 세포(CD8+E7+ 세포)의 개수로 나타낸다.
제조사(Miltenyi Biotec, Auburn, CA)의 제안에 따라, GentleMACS Dissociator 및 고형 종양 균질화 프로토콜을 사용하여 종양 샘플을 처리하였다. 종양-침윤 CD8+, CD4+Foxp3+(Treg) 및 CD11b+Gr-1+(MDSC) 세포의 개수를 CD45+ 조혈 세포 집단 내에서 유동 세포 분석법을 사용하여 분석하였다. 종양을 보유한, 처리된 마우스 및 대조군 마우스의 비장에서의 Treg 세포 및 MDSC의 수준을 동일한 유동 세포 분석을 사용하여 평가하였다.
통계적 분석
모든 통계적 매개변수는 GraphPad Prism Software(San Diego, CA)를 사용하여 계산하였다. 그룹간 통계학적 유의성은 일원분산분석 및 투키 다중 비교 사후 검정에 의해 결정되었다(P < 0.05는 통계적으로 유의미한 것으로 고려되었다).
결과
GITR
효능제
항체와의 조합
침윤성 CD4+ T 세포의 총 개수는 병용 요법에 따라 증진되었다. 도 46a는 GITR 효능제 항체와 조합한 Lm-LLO-E7의 투여가 단일 요법 단독과 비교해도 종양 침윤성 총 CD4+ T 세포를 유의미하게 증진시킨 것을 보여준다. 중요하게는, GITR 효능제 항체와 조합한 LM-LLO-E7의 투여가 Treg 세포(CD4+Foxp3+)의 총 개수에 대해서는 유의미한 영향이 없었다(도 46b).
비-Treg CD4+ T 세포의 총 개수는 병용 요법에 따라 증진되었다. 도 47a는 GITR 효능제 항체와 조합한 Lm-LLO-E7 투여가 비-Treg(CD4+Foxp3-) CD4+ T 세포의 총 개수를 유의미하게 증진시킨 것을 보여준다. 흥미롭게도, 리스테리아 기반 백신의 투여는 그 자체로 총 CD4에서 Foxp3 전체 백분율을 유의미하게 감소시키고 FITR 효능제 항체와의 조합으로, PBS 또는 효능제 그룹 단독과 비교하여 감소가 훨씬 유의미하게 더 높다(도 47b).
병용 요법은 또한 총 CD8+ T 세포의 증진된 종양 침윤을 야기하였다. 항 GITR 효능제 항체(Ab)와 조합한 LM-LLO 및 LM-LLO-E7의 투여는 종양 침윤성 CD8+ T 세포를 유의미하게 증진시키는 것이 관찰되었다. (도 48a) 흥미롭게도, LM-LLO-E7은 항-GITR Ab와 함께 종양 침윤성 항원 특이적 CD8+E7+ T 세포를 유의미하게 증진시키는 것이 관찰되었다. (도 48b)
병용 요법은 종양에서 CD8/Treg 비율을 증진시켰다. 종양에서 CD8/Treg 비율은 PBS 또는 항체 그룹 단독과 비교하여 조합 GITR Ab 그룹에서 유의미하게 증진된 것이 발견되었다. (도 49a) E7-CD8/Treg 비율은 LM-LLO-E7 및 항-GITR 조합 그룹에서 비-유의미하게 증가하는 것으로 관찰되었다. (도 49b)
효능제 GITR 항체에 의한 MDSC의 유도. GITR에 대한 효능제 Ab는 PBS 그룹과 비교하여 유의미하게 MDSC를 유도하는 것으로 관찰되었다. (도 50a) 또한, CD8/MDSC 비율은 LM-LLO-E7과 조합한 항-GITR Ab로 유의미하게 증가하였다. (도 50b) 흥미롭게도 E7+CD8+/MDSC 비율은 LM-LLO-E7과 조합한 항-GITR Ab로 유의미하게 증가하였다. (도 50c)
OX40
효능제
항체와의 조합
흥미롭게도, OX40 효능제 Ab는 자체로서 PBS 그룹과 비교하여 총 CD4+T 세포를 유의미하게 증진시켰다. OX40 효능제 Ab와 조합한 리스테리아 기반 LM-LLO-E7은 종양 침윤성 총 CD4+T 세포를 PBS 그룹과 비교한 경우에만 유의미하게 증진시켰으나, 단일 요법 단독과 비교해서는 아니었다. (도 52a) OX40 Ab 유도 Treg 세포(CD4+Foxp3+)는 리스테리아 기반 LM-LLO 및 LM-LLO-E7와의 조합에서 유의미하게 감소되었다. (도 52b)
종양-침윤성 총 비 Treg(CD4+FoxP3-)의 개수 및 총 CD4+ T 세포의 Treg 백분율을 분석하였다. OX40 효능제 Ab와 조합한 리스테리아 기반 E7 백신은 비 Treg(CD4+Foxp3-) T 세포의 총 개수를 유의미하게 증진시켰다. (도 53a) 리스테리아 기반 백신은 자체로서 총 CD4에서 Foxp3 세포의 전체 %를 유의미하게 감소시키고 OX40 효능제 Ab와의 조합으로, 모든 그룹과 비교하여 감소가 훨씬 유의미하게 더 높았다. (도 53b)
항원 특이적 CD8+E7+ 세포뿐 아니라 총 CD8+ T 세포의 개수가 병용 요법에 따라 증가하였다. LM-LLO-E7와 항-OX40 Ab의 조합은 PBS 그룹과 비교하여 CD8+T 세포의 총 개수에서 유의미한 증가를 유도하였다. (도 54a) 또한, LM-LLO-E7은 항-OX40 효능제 Ab의 투여와 병용시 종양 침윤성 항원 특이적 CD8+E7+ T 세포를 유의미하게 증진시키는 것이 관찰되었다. (도 54b)
CD8/Treg 및 E7CD8/Treg의 비율은 병용 요법에 따라 증진되었다. 종양에서 CD8/Treg 비율은 모든 그룹과 비교하여 항-OX40 효능제 Ab 및 LM-LLO-E7 조합 그룹에서 유의미하게 증진된 것이 발견되었다. (도 55a) 종양에서 E7CD8/Treg 비율은 모든 그룹과 비교하여 항-OX40 효능제 Ab 및 LM-LLO-E7 조합 그룹에서 유의미하게 증진된 것이 발견되었다. (도 55b)
병용 요법에 따른 MDSC의 유도. 효능제 OX40 Ab는 MDSC를 비-유의미하게 증가시키고 LM-LLO-E7과의 조합은 이 면역억제성 MDSC를 유의미하게 저하시키는 것이 관찰되었다. (도 56a) CD8/MDSC 비율은 LM-LLO-E7과 조합한 항-OX40 Ab로 유의미하게 증가하였다. (도 56b) 그리고, E7+CD8+/MDSC 비율은 LM-LLO-E7과 조합한 항-OX40 Ab로 유의미하게 증가하였다. (도 56c)
결론
본원에 제시된 결과는 리스테리아 기반 E7 백신과 조합하여 공동-자극 GITR 및 OX40 경로를 억제하는 항-종양 및 면역 반응을 보여준다. LM-LLO-E7 종양 백신의 존재 중 GITR 또는 OX40 경로의 공동-자극은 증진된 항-종양 활성 및 증진된 생존을 나타냈다(실시예 20). 비록 펩티드 기반 E7 백신과 항-GITR 또는 항-OX40의 조합이 항원 특이적 및 총 CD8을 유의미하게 증가시켰지만, 이들은 Treg 또는 MDSC 집단에 대해서는 효과가 없었다. 어느 정도 이들 효능제 항체 요법은 TC1 종양 모델에서 그 자체로 또는 펩티드 기반 E7 백신과 조합하여 종양에서 면역 억제 세포를 증가시키는 것이 발견되었다.
리스테리아 기반 백신은 Tregs 및 MDSC를 포함하는 면역 억제 세포를 저하시키는 것으로 알려져 있다. 리스테리아 기반 백신의 존재 중 GITR 또는 OX40 경로의 공동-자극은 CD8 T 세포 대 MDSC 집단의 비율을 증가시키고 CD8 및 항원 특이적 CD8을 늘려, 이에 따라 개선된 항-종양 활성 및 생존과 관련되는 주효 세포/면역억제 세포 비율을 전반적으로 증진시키는 것으로 여기에서 관찰되었다.
재료 및 방법 (실시예 22 내지 27)
올리고뉴클레오티드는 Invitrogen(Carlsbad, CA)에 의해 합성되었으며 DNA 서열결정은 Genewiz Inc, South Plainfield, NJ에 의해 실시되었다. 유동 세포 계측 시약은 Becton Dickinson Biosciences(BD, San Diego, CA)로부터 구입하였다. 세포 배양 배지, 보충제 및 모든 다른 시약은, 표시되지 않는 한 Sigma(St. Louise, MO)로부터 입수하였다. Her2/neu HLA-A2 펩티드는 EZbiolabs(Westfield, IN)에 의해 합성되었다. 완전 RPMI 1640(C-RPMI) 배지는 2 mM 글루타민, 0.1 mM 비-필수 아미노산, 및 1 mM 피루브산나트륨, 10% 우태혈청, 페니실린/스트렙토마이신, Hepes(25 mM)를 포함하였다. 다클론성 항-LLO 항체는 이전에 기재된 바와 같으며 항-Her2/neu 항체는 Sigma로부터 구입하였다.
마우스 및 세포주
모든 동물 실험은 University of Pennsylvania 또는 Rutgers University에서 IACUC에 의해 승인된 프로토콜에 따라 수행되었다. FVB/N 마우스는 Jackson laboratories(Bar Harbor, ME)로부터 구입하였다. 래트 Her2/neu 종양-단백질을 과발현하는 FVB/N Her2/neu 형질전환 마우스는 University of Pennsylvania의 동물 거점 시설에서 수용 및 사육되었다. NT-2 종양 세포주는 높은 수준의 래트 Her2/neu 단백질을 발현하며, 이들 마우스에서 자생하는 유방 종양으로부터 유래되었으며 이전에 기재된 바와 같이 성장시켰다. DHFR-G8(3T3/neu) 세포는 ATCC로부터 입수하였고 ATCC 권고에 따라 성장시켰다. EMT6-Luc 세포주는 Dr. John Ohlfest (University of Minnesota, MN)로부터 기증받았고 완전 C-RPMI 배지에서 성장시켰다. 생물발광 작업은 University of Pennsylvania(Philadelphia, PA)의 Small Animal Imaging Facility(SAIF)의 지도 하에 실시되었다.
리스테리아
구성체 및 항원 발현
Her2/neu-pGEM7Z는 University of Pennsylvania의 Dr. Mark Greene에 의해 친절하게 제공되었으며 pGEM7Z 플라스미드(Promega, Madison WI)로 클로닝된 전장 인간 Her2/neu(hHer2) 유전자를 포함하였다. 이 플라스미드는 pfx DNA 중합효소(Invitrogen) 및 표 6에 기재된 올리고를 사용하여 PCR에 의해, hHer-2/neu의 3 개 세그먼트, 즉 EC1, EC2, 및 IC1을 증폭하기 위한 주형으로서 사용되었다.
표 6: 인간 her-2-키메라의 클로닝을 위한 프라이머
| DNA 서열 | 염기쌍 영역 | 아미노산 영역 또는 연결 지점 |
|
| Her-2- 키메라 (F) |
TGATCTCGAGACCCACCTGGACATGCTC (서열번호: 75) |
120-510 | 40-170 |
| HerEC1-EC2F (연결 지점) |
CTACCAGGACACGATTTTGTGGAAG-AATATCCAGGAGTTTGCTGGCTGC (서열번호: 76) |
510/1077 |
170/359 |
| HerEC1-EC2R (연결 지점) |
GCAGCCAGCAAACTCCTGGATATT-CTTCCACAAAATCGTGTCCTGGTAG (서열번호: 77) |
||
| HerEC2-ICIF (연결 지점) |
CTGCCACCAGCTGTGCGCCCGAGGG-CAGCAGAAGATCCGGAAGTACACGA (서열번호: 78) |
1554/2034 |
518/679 |
| HerEC2-ICIR (연결 지점) |
TCGTGTACTTCCGGATCTTCTGCTGCCCTCGGGC GCACAGCTGGTGGCAG (서열번호: 79) | ||
| Her-2- 키메라 (R) |
GTGGCCCGGGTCTAGATTAGTCTAAGAGGCAGCCATAGG (서열번호: 80) | 2034-2424 | 679-808 |
Her-2/neu 키메라 구성체는 SOEing PCR 법 및 주형으로서 각각 별개의 hHer-2/neu 세그먼트에 의한 직접 융합에 의해 생성되었다. 프라이머는 표 7에 나타낸다.
표 7
| DNA 서열 |
염기쌍 영역 | 아미노산 영역 | |
| Her-2-EC1(F) | CCGCCTCGAGGCCGCGAGCACCCAAGTG (서열번호: 81) |
58-979 | 20-326 |
| Her-2-EC1(R) | CGCGACTAGTTTAATCCTCTGCTGTCACCTC (서열번호: 82) |
||
| Her-2-EC2(F) | CCGCCTCGAGTACCTTTCTACGGACGTG (서열번호: 83) |
907-1504 | 303-501 |
| Her-2- EC2(R) | CGCGACTAGTTTACTCTGGCCGGTTGGCAG (서열번호: 84) |
||
| Her-2-Her-2-IC1(F) | CCGCCTCGAGCAGCAGAAGATCCGGAAGTAC (서열번호: 85) |
2034-3243 | 679-1081 |
| Her-2-IC1(R) | CGCGACTAGTTTAAGCCCCTTCGGAGGGTG (서열번호: 86) |
상이한 세그먼트 인간 Her2 영역의 증폭을 위한 프라이머의 서열
ChHer2 유전자는 XhoI 및 SpeI 제한 효소를 사용하여 pAdv138로부터 절단하고, Lmdd 셔틀 벡터, pAdv134 내에서 LLO의 절단된, 비-용혈 단편과 함께 프레임 내 클로닝되었다. 삽입체, LLO 및 hly 프로모터의 서열은 DNA 서열결정 분석에 의해 확인되었다. 이 플라스미드는 전기천공-적격 actA , dal , dat 돌연변이체 리스테리아 모노사이토게네스 균주 내로 전기천공되었으며, LmddA 및 양성 클론은 스트렙토마이신(250 mg/ml)을 포함하는 뇌 심장 침출액(BHI) 아가 플레이트 상에서 선별되었다. 일부 실험에서 hHer2/neu(Lm-hHer2) 단편을 발현하는 유사한 리스테리아 균주가 비교 목적을 위해 사용되었다. 모든 연구에서, 비관련 리스테리아 구성체(Lm-대조군)가 면역계에서 리스테리아의 항원 비의존성 효과를 설명하기 위해 포함되었다. Lm-대조군은 ADXS31-164(LmddA-ChHer2)와 같은 동일한 리스테리아 플랫폼을 기반으로 하지만, HPV16-E7 또는 NY-ESO-1과 같은 상이한 항원을 발현하였다. 리스테리아로부터의 융합 단백질의 발현 및 분비를 시험하였다. 각 구성체는 생체 내 2 회 계대되었다.
세포독성 분석
3 내지 5 마리 FVB/N 마우스의 그룹을 1 x 10⁸ 콜로니 형성 유닛(CFU)의 Lm-LLO-ChHer-2, ADXS31-164, Lm-hHer-2 ICI 또는 Lm-대조군(비관련 항원을 발현함)으로 1 주 간격으로 3 회 면역화시키거나 미처리로 두었다. NT-2 세포를 시험관내 성장시켰으며 트립신으로 탈착시키고 37℃에서 45 분간 미토마이신 C(무혈청 C-RPMI 배지 중 250 μg/ml)로 처리하였다. 5 회 세척 후, 이들을 면역화된 동물 또는 미처리 동물로부터 수확된 비장세포와 1:5(자극제: 응답자)의 비율로 37℃ 및 5% CO2에서 5 일 동안 공동-인큐베이션 하였다. 표준 세포독성 분석을 이전에 기재된 방법에 따라 표적으로서 유로퓸 표지된 3T3/neu(DHFR-G8) 세포를 사용하여 수행하였다. 사멸된 표적 세포로부터 방출된 유로퓸을 590 nm에서 분광광도계(Perkin Elmer, Victor2)를 사용하여 4 시간 인큐베이션 후 측정하였다. 특이적 용해 백분율은 (실험 그룹에서의 용해-자발적 용해)/(최대 용해-자발적 용해)로서 정의되었다.
면역화된 마우스로부터의
비장세포에
의한 인터페론-γ 분비
3 내지 5 마리 FVB/N 또는 HLA-A2 형질전환 마우스의 그룹을 1 x 10⁸ CFU의 ADXS31-164, 음성 리스테리아 대조군(비관련 항원을 발현함)으로 1주 간격으로 3 회 면역화시키거나 미처리로 두었다. FVB/N 마우스로부터의 비장세포를 마지막 면역화 1 주일 후에 분리하고 C-RPMI 배지에서 미토마이신 C 처리된 NT-2 세포의 존재 중 5 x 10⁶ 세포/웰로 24 웰 플레이트에서 공동-배양하였다. HLA-A2 형질전환 마우스로부터의 비장세포를 1mM의 HLA-A2 특이적 펩티드 또는 1 μg/ml의 재조합 His-태그된 ChHer2 단백질의 존재 중에 배양하고, E. coli에서 생산하여 니켈 기반의 친화성 크로마토그래피 시스템에 의해 정제하였다. 상등액으로부터의 샘플을 24 또는 72 시간 후에 수득하고 제조자의 권고에 따라 마우스 IFN-γ 효소-결합 면역흡착 분석(ELISA) 키트를 사용하여 인터페론-γ(IFN-γ)의 존재에 대해 테스트하였다.
Her2
형질전환 동물에서의 종양 연구
6 주령 FVB/N 래트 Her2/neu 형질전환 마우스(9 내지 14 마리/그룹)를 5 x 10⁸ CFU 의 Lm-LLO-ChHer2, ADXS31-164 또는 Lm-대조군으로 6 회 면역화하였다. 이들을 자발적 유방 종양의 출현에 대해 주 2 회 관찰하였으며, 이는 52 주까지 전자 캘리퍼스를 사용하여 측정하였다. 탈출 종양은 이들이 평균 직경 1 ㎠ 크기에 도달할 때 잘라내어 이후 -20℃에서 RNA 중에 보존하였다. 이들 종양의 탈출에 대한 Her2/neu 단백질의 돌연변이의 영향을 결정하기 위해, 게놈 DNA 단리 키트를 사용하여 게놈 DNA를 추출하고 서열결정하였다.
비장 및 종양에서 조절 T 세포에 대한
ADXS31
-164의 효과
마우스에 1 x 10⁶ NT-2 세포를 피하(s.c.) 이식하였다. 7, 14 및 21 일째에, 이들을 1 x 10⁸ CFU의 ADXS31-164, LmddA -대조로 면역화하거나 미처리로 두었다. 종양 및 비장을 28 일째에 추출하고 CD3+/CD4+/FoxP3+ Treg의 존재에 대해 FACS 분석으로 테스트하였다. 간략하게, 비장을 C-RPMI 배지 중 2 개의 유리 슬라이드 사이에서 균질화하여 비장세포를 분리하였다. 종양을 멸균 면도날로 갈고 PBS 중 DNase(12 U/ml), 및 콜라게나아제(2 mg/ml)를 함유하는 완충액으로 소화시켰다. 교반하면서 실온에서 60분 인큐베이션한 후, 세포를 격렬한 피펫팅으로 분리하였다. 적혈구 세포를 RBC 용해 완충액으로 용해한 후 10% FBS를 함유하는 완전 RPMI-1640 배지로 수 회 세척하였다. 나일론 메쉬를 통해 여과한 후, 종양 세포 및 비장세포를 FACS 완충액(2% FBS/PBS)에 재현탁하고 항-CD3-PerCP-Cy5.5, CD4-FITC, CD25-APC 항체로 염색한 후 투과화 및 항-Foxp3-PE로 염색하였다. 유동 세포 계측 분석을 4-색 FACS calibur(BD)를 사용하여 수행하고 데이터를 세포 퀘스트 소프트웨어(BD)를 사용하여 분석하였다.
통계적 분석
로그-랭크 카이-제곱 테스트를 생존 데이터에 사용하였고 CTL 및 ELISA 분석에 스튜던트 t 테스트를 사용하였으며, 삼중으로 실시하였다. 0.05 미만의 p-값(*로 표시됨)은 이들 분석에서 통계학적으로 유의미한 것으로 고려되었다. 모든 통계학적 분석은 Prism 소프트웨어, V.4.0a(2006) 또는 SPSS 소프트웨어, V.15.0(2006)로 실시하였다. 모든 FVB/N 래트 Her2/neu 형질전환 연구를 위해 본 발명자들은 그룹 당 8 내지 14 마리의 마우스를 사용하였으며, 모든 야생형 FVB/N 연구에서 달리 명시되지 않는 한 그룹당 적어도 8 마리의 마우스를 사용하였다. 모든 연구는 Her2/neu 형질전환 마우스 모델에서 장기 종양 연구를 제외하고는 적어도 1 회 반복되었다.
실시예
21: Her-2 단편에 융합된
LLO
단편을 분비하는
L.
모노사이토게네스
균주의 생성:
ADXS31
-164의 제작
키메라 Her2 / neu 유전자(ChHer2)의 제작은 다음과 같다. 요약하면, ChHer2 유전자는 SOEing PCR 법에 의해 Her2/neu 단백질의 두 개의 세포외(aa 40 내지 170 및 aa 359 내지 433) 및 하나의 세포내 단편(aa 678 내지 808)의 직접 융합에 의해 생성되었다. 키메라 단백질은 단백질의 공지된 인간 MHC 클래스 I 에피토프 중 대부분을 보유한다. ChHer2 유전자를 플라스미드, pAdv138(Lm-LLO-ChHer2를 구성하기 위해 사용되었음)로부터 절제하고 LmddA 셔틀 플라스미드 내로 클로닝하여, 플라스미드 pAdv164를 야기하였다(도 57a). 이들 2개의 플라스미드 골격 사이에는 2 개의 주된 차이가 있다. 1) pAdv138은 재조합 박테리아의 시험관내 선별을 위해 클로람페니콜 저항성 마커(cat)를 사용하는 반면, pAdv164는 바실러스 서브틸리스로부터의 D-알라닌 라세미화 효소 유전자(dal)를 보유하며, 이는 dal -dat 유전자가 결여된 LmddA 균주에서 시험관내 선별 및 생체내 플라스미드 보유를 위한 대사 보완 경로를 사용한다. 이 백신 플랫폼은 조작된 리스테리아 균주의 항생제 저항성에 대한 FDA 우려를 다루기 위해 설계 및 개발되었다. 2) pAdv138와 달리, pAdv164는 플라스미드(하기 서열 및 도 57a 참조)에서 prfA 유전자의 카피를 갖고 있지 않은데, 이것은 Lmdd 균주의 생체내 보완을 위해 필요하지 않기 때문이다. LmddA 백신 균주는 또한 actA 유전자(리스테리아의 세포내 이동 및 세포에서 세포로의 확산의 원인임)가 결여되어 있어 이 골격으로부터 유래된 재조합 백신 균주가 이의 모체 균주인 Lmdd로부터 유래된 것보다 100 배 적은 독성을 나타낸다. LmddA-기반 백신은 또한 면역화된 마우스의 비장으로부터의 Lmdd-기반 백신보다 더 빨리(48 시간 미만) 제거된다. 이 균주로부터의 융합 단백질 tLLO-ChHer2의 발현 및 분비는 8 시간의 시험관내 성장 후 TCA 침전된 세포 배양 상등액에서의 Lm-LLO-ChHer2에서와 비슷하였는데(도 57b), 웨스턴 블롯 분석을 사용하여 ~104 KD의 밴드가 항-LLO 항체에 의해 검출되었기 때문이다. tLLO만을 발현하는 리스테리아 골격 균주가 음성 대조군으로서 사용되었다.
pAdv164 서열(7075 염기쌍)(도 57a 및 57b 참조):
tgacagtgtcgaatgcagggtaaatgccggacgcagctgaaacggtatctcgtccgacatgtcagcagacgggcgaaggccatacatgccgatgccgaatctgactgcattaaaaaagccttttttcagccggagtccagcggcgctgttcgcgcagtggaccattagattctttaacggcagcggagcaatcagctctttaaagcgctcaaactgcattaagaaatagcctctttctttttcatccgctgtcgcaaaatgggtaaatacccctttgcactttaaacgagggttgcggtcaagaattgccatcacgttctgaacttcttcctctgtttttacaccaagtctgttcatccccgtatcgaccttcagatgaaaatgaagagaaccttttttcgtgtggcgggctgcctcctgaagccattcaacagaataacctgttaaggtcacgtcatactcagcagcgattgccacatactccgggggaaccgcgccaagcaccaatataggcgccttcaatccctttttgcgcagtgaaatcgcttcatccaaaatggccacggccaagcatgaagcacctgcgtcaagagcagcctttgctgtttctgcatcaccatgcccgtaggcgtttgctttcacaactgccatcaagtggacatgttcaccgatatgttttttcatattgctgacattttcctttatcgcggacaagtcaatttccgcccacgtatctctgtaaaaaggttttgtgctcatggaaaactcctctcttttttcagaaaatcccagtacgtaattaagtatttgagaattaattttatattgattaatactaagtttacccagttttcacctaaaaaacaaatgatgagataatagctccaaaggctaaagaggactataccaactatttgttaattaa (서열번호: 87)
실시예
22:
ADXS31
-164는 LM-
LLO
-
ChHER2만큼
면역원성이다
항-Her2/neu 특이적 세포독성 T 세포를 생성하는 데 있어서 ADXS31-164의 면역원성 특성을 표준 CTL 분석으로 Lm-LLO-ChHer2 백신의 것과 비교하였다. 두 백신은 3T3/neu 표적 세포에 의해 발현된 Her2/neu 항원에 대해 강력하지만 비슷한 세포독성 T 세포 반응을 유발하였다. 따라서, LLO에 융합된 Her2의 세포내 단편만을 발현하는 리스테리아로 면역화된 마우스는 더 많은 MHC 클래스 I 에피토프를 함유하는 키메라보다 더 낮은 용해 활성을 보였다. CTL 활성은 미처리 동물 또는 비관련 리스테리아 백신이 주사된 마우스에서 검출되지 않았다(도 58a). ADXS31-164는 또한 야생형 FVB/N 마우스로부터의 비장세포에 의한 IFN-γ의 분비를 자극할 수 있었다(도 58b). 이것은 미토마이신 C 처리된 NT-2 세포와 공동-배양된 이들 세포의 배양 상등액에서 검출되었으며, 이는 높은 수준의 Her2/neu 항원을 발현한다(도 58c).
ADXS31-164로 면역화 후 인간 MHC 클래스 I 에피토프의 적절한 가공 및 제시가 HLA-A2 마우스에서 테스트되었다. 면역화된 HLA-A2 형질전환 동물로부터의 비장세포를 Her2/neu 분자의 세포외(HLYQGCQVV 서열번호: 88 또는 KIFGSLAFL 서열번호: 89) 또는 세포내(RLLQETELV 서열번호: 90) 도메인에 위치한 매핑된 HLA-A2 제한 에피토프와 일치하는 펩티드와 함께 72 시간 동안 공동-배양하였다(도 58c). 재조합 ChHer2 단백질이 양성 대조로 사용되었으며 비관련 펩티드 또는 펩티드가 없는 것이 음성 대조로 사용되었다. 이 실험으로부터의 데이터는 ADXS31-164가 표적 항원의 상이한 도메인에 위치한 인간 에피토프에 대해 항-Her2/neu 특이적 면역 반응을 유발할 수 있다는 것을 보여준다.
실시예
23:
ADXS31
-164는 자발적 유방 종양의 발생을 예방하는 데 있어서 Lm-LLO-ChHER2보다 더 효과적이었다
ADXS31-164의 항-종양 효과를 20 내지 25 주령에서 느리게 성장하는 자발적 유방 종양을 발생시키는 Her2/neu 형질전환 동물에서 Lm-LLO-ChHer2의 것과 비교하였다. 비관련 리스테리아 -대조 백신으로 면역화된 모든 동물은 21-25주 이내에 유방 종양이 발생하였으며 33 주 전에 희생되었다. 반면, 리스테리아-Her2/neu 재조합 백신은 유방 종양의 형성에서 유의미한 지연을 야기하였다. 45 주째에, Lm-LLO-ChHer2로 면역화된 마우스의 25%에 비해, ADXS31-164 백신접종된 마우스는 50% 넘게(9 마리 중 5 마리) 여전히 종양이 없었다. 52 주째에, ADXS31-164로 면역화된 8 마리 마우스 중 2 마리가 여전히 무-종양으로 남아있었지만, 다른 실험 그룹으로부터의 모든 마우스는 이미 그들의 질환에 굴복하였다(도 59). 이들 결과는 더욱 약독화되었음에도 불구하고, ADXS31-164가 Her2/neu 형질전환 동물에서 자발적 유방 종양의 발생을 예방하는 데 있어 Lm-LLO-ChHer2 보다 더 효과적임을 나타낸다.
실시예 24: ADXS31-164 면역화에 따른 HER2/Neu 유전자에서의 돌연변이
Her2/neu의 MHC 클래스 I 에피토프에서의 돌연변이는, Her2/neu의 세포외 도메인에서 에피토프를 표적으로 하는 단클론 항체인 트라스투주맙(Herceptin) 또는 소형 단편 백신으로의 면역화에 따른 종양 탈출에 대해 책임이 있는 것으로 고려되고 있다. 이를 평가하기 위해, 게놈 물질을 형질전환 동물에서의 탈출 종양으로부터 추출하고 키메라 또는 대조 백신으로 면역화된 종양에서 neu 유전자의 상응하는 단편이 서열결정되었다. 돌연변이는 임의의 백신접종된 종양 샘플의 Her-2/neu 유전자 내에서 관찰되지 않아, 대안적인 탈출 기전을 제안한다(데이터 미도시).
실시예
25:
ADXS31
-164는
종양내
T 조절 세포에서 유의미한 저하를
야기한다
비장 및 종양에서 조절 T 세포의 빈도에 대한 ADXS31-164의 영향을 해명하기 위해, 마우스에 NT-2 종양 세포를 이식하였다. 비장세포 및 종양내 림프구를 3 회 면역화 후 분리하고, CD3+/CD4+/CD25+/FoxP3+ 세포로 정의되는 Treg에 대해 염색하였는데, 개별적으로 분석했을 때 FoxP3 또는 CD25 마커에서는 비슷한 결과가 얻어졌다. 결과는 ADXS31-164로의 면역화가, 비관련 리스테리아 백신 또는 미처리 동물과 비교하여, 비장에서 Treg의 빈도에 대한 영향이 없음을 나타냈다(도 60). 대조적으로, 리스테리아 백신 면역화는 종양에서 Treg의 존재에 상당한 영향을 초래하였다(도 61a). 비처리 종양에서 모든 CD3+ T 세포의 평균 19.0%가 Treg인 반면, 이 빈도는 비관련 백신에서 4.2% 및 ADXS31-164에서 3.4%까지 감소하였으며, 종양내 Treg의 빈도에서 5-배 감소하였다(도 61b). LmddA 백신 중 하나로 처리된 마우스의 종양내 Treg의 빈도에서의 감소는 종양의 크기에서의 차이에 기인할 수 없을 것이다. 대표 실험에서, ADXS31-164로 면역화된 마우스로부터의 종양은 비처리된 마우스(8.69±0.98, n=5, p<0.01) 또는 무관한 백신으로 처리된 마우스(8.41±1.47, n=5, p=0.04)로부터의 종양보다 유의미하게 더 작지만[평균 직경(mm)±SD, 6.71±0.43, n=5], 이들 마지막 두 그룹의 비교는 종양 크기에서 통계학적으로 유의미한 차이를 보이지 않았다(p=0.73). LmddA 백신으로 처리된 종양에서의 Treg의 더 낮은 빈도는 증가된 종양내 CD8/Treg 비율을 야기하여, 더 유리한 종양 미세환경이 LmddA 백신으로 면역화된 후에 수득될 수 있음을 제안한다. 그러나, 표적 항원 HER2/neu(ADXS31-164)를 발현하는 백신만이 종양 성장을 감소시킬 수 있었으며, 이는 Treg에서의 저하가 종양에서 항원-특이적 반응의 존재시에만 영향이 있음을 나타내는 것이다.
실시예
26:
ADXS31
-164로의 말초 면역화는 뇌에서 전이성 유방암 세포주의
성장을 지연시킬 수
있다
마우스를 ADXS31-164 또는 비관련 Lm-대조 백신으로 IP 면역화한 다음 루시페라아제 및 낮은 수준의 Her2/neu를 발현하는 5,000 개 EMT6-Luc 종양 세포를 두개내 이식하였다(도 62a). 종양 접종-후 상이한 시간에 마취된 마우스의 생체외 이미징으로 모니터링하였다. 종양 접종-후 8 일째에 모든 대조 동물에서 종양이 검출되었으나, ADXS31-164 그룹에서는 어떠한 마우스도 임의의 검출 가능한 종양을 보이지 않았다(도 62a 및 62b). ADXS31-164는 이들 종양의 발생을 명백히 지연시킬 수 있는데, 종양 접종-후 11 일째에 음성 대조군의 모든 마우스는 종양에 이미 굴복했으나, ADXS31-164 그룹의 모든 마우스는 여전히 생존해 있었고 종양 성장의 작은 징후만을 보였기 때문이다. 이들 결과는 ADXS31-164의 말초 투여로부터 얻어진 면역 반응이 중추 신경계에 도달 가능할 것이고 LmddA-기반 백신이 CNS 종양의 치료를 위한 유망한 용도를 가질 것임을 강력하게 제안한다.
실시예
27:
Her2
/
neu
양성 BC 마우스 모델에서
Lm
-기반
HER2
/
neu
백신,
GITR
효능제 항체 및 관문 억제제, PD-1
Ab의
3중
조합의 치료적 효능 및 면역 조절 효과
실험 디자인: 마우스 종양 모델: 두 가지 마우스 종양 모델이 사용되었다: 래트 Her-2/FVB/N 마우스 모델 및 FVB/N Her-2/neu 형질전환 마우스 모델.
항체: 항-PD1(RMP-14 클론, 래트 IgG2a) 및 항-GITR(DTA-1 클론). 항체 둘 다 주 2 회 i.p 주사되었다. 항-PD-1 Ab는 실험 내내 1 mg/Kg b.wt.의 용량으로 주어진다. 효능제 GITR Ab에서는 총 4 용량이 5 mg/Kg b.wt.의 용량으로 주어진다.
래트 Her-2/ FVB /N 마우스 모델의 실험: 래트와 인간 Her-2/neu 단백질은 고도로 상동성이므로, GITR 효능제 및 항-PD-1 Ab와 조합한 Lm-기반 Her-2/neu 백신의 치료적 항종양 효과를 시험하기 위해 래트 Her-2/FVB/N 마우스 모델을 사용하였다. 암컷 FVB/N 마우스(8-10 주령; 5/그룹) 우측 옆구리에 높은 수준의 래트 HER2/neu 단백질을 발현하는 1 x 10⁶ NT-2 종양 세포를 주사함으로써 종양을 s.c. 이식한다. 일단 종양 용적이 약 0.5 ㎤에 도달하면, 마우스를 16 그룹으로 무작위 분배하고(표 8), LLO 및 EER2/neu(Lm, Lm-LLO 및 ADXS31-164), 항-PD1 Ab, 및 효능제 항-GITR Ab의 존재 또는 부재중 고도로 약독화된 Lm-기반 백신 벡터로(i.p.; 1 내지 5 X 10⁸ 콜로니 형성 단위, 생체내 독성 분석으로 결정) 처치하였다. 프라임 용량의 백신이 7-d 간격의 2 회 부스트를 뒤따른다.
표 8: 치료적, 면역 반응, 및 종양 예방 연구를 위한 16 그룹으로의 마우스 분포.
| 단일 처치 | + GITR 효능제 Ab | + 항-PD-1 Ab | + GITR 효능제 + 항-PD-1 Ab |
| 1. PBS | 5. PBS | 9. PBS | 13. PBS |
| 2. Lm | 6. Lm | 10. Lm | 14. Lm |
| 3. Lm-LLO | 7. Lm-LLO | 11. Lm-LLO | 15. Lm-LLO |
| 4. Lm-LLO-Her2/neu (ADXS31-164) |
8. ADXS31-164 | 12. ADXS31-164 | 16. ADXS31-164 |
효능제 GITR Ab를 총 4 용량의 백신과 동일 날짜에 시작하여 투여한다. PD1은 조기 활성화 및 T 세포 고갈 둘 다에 역할을 하기 때문에, 백신 이후 항-PD-1의 투여는 고갈된 T 세포를 활성화시킬 수 있다. 따라서, 항원 특이적 반응이 추가로 증진될 수 있는지를 결정하기 위해 항-PD1 Ab는 제2 백신접종 3 일 후에 주사한다. 대조 그룹에서, 마우스는 PBS를 받는다. 종양 성장 및 생존을 측정한다. 디지털 캘리퍼를 이용하여 종양을 매주 2 회 측정하고, 종양 용적은 식 V=(W2*L)/2를 사용하여 계산하는데, 여기에서 V는 용적, L은 길이(더 긴 직경)이고 W는 폭(더 짧은 직경)이다. 마우스는 빈사 상태시 또는 종양 용적이 1.5 ㎤에 도달하면 희생시킨다. 일반적 처치 계획은 도 63에 나타낸다. 실험은 2 회 반복한다.
FVB /N Her-2/ neu 형질전환 마우스 모델의 실험: NT-2 세포주를 사용한 이식 가능 종양 쥣과 모델은 Her-2/neu 항원에 대한 내성이 거의 없는 신속-성장 종양 모델이다. 더 도전적인 종양 모델은 Her-2/neu 항원에 대한 내성이 백신의 면역요법 효능을 약화시키는 데 상당한 역할을 할 것으로, 래트 Her-2/neu 형질전환 마우스 모델이다. 이 모델에서, 마우스는 20-25 주령 사이에 자발적인 느리게 성장하는 유방 종양을 발생시킨다. 이 마우스 계통을 사용하는 것에 의해, 본 발명자들은 Lm-기반 Her2/neu 백신이 Her-2/neu 자기-항원에 대한 내성을 극복할 수 있는지 여부를 시험할 수 있다. 이들 마우스의 번식 쌍은 Advaxis, Inc.에 의해 제공된다.
마우스를 표 8에 나타낸 바와 같이 16 그룹으로 분배한다. 6 번째 주부터 시작하여 3 주 간격으로 마우스를 총 6 용량(1 내지 5 X 10⁸ 콜로니 형성 단위)으로 면역화한다. 위에 설명한 신속하게 성장하는 모델과 비교하여, 이 모델에서는 백신으로 더 많은 면역화가 가능한데, 이것이 예방적 모델이고 자발적 종양은 대략 20 번째 주까지는 나타나기 시작하지 않기 때문이다. 효능제 GITR Ab를 총 6 용량으로 백신과 동일 날짜에 시작하여 투여하고 각 용량의 백신과 함께 준다. 항-PD1 Ab 처치는 최종 백신접종 3-4 일 후에 시작하고 실험 동안 계속되었다. 마우스는 매주 2 회 자발적 유방 종양의 출현 및 성장을 52 주까지 관찰한다. 자발적 종양 형성은 상부 및 하부 마우스 유선의 촉진에 의해 검출하는데, 이는 직경 1 내지 2 mm만큼 작은 종양을 확인할 것이다. 일반적 처치 계획은 도 5에 나타낸다.
면역 반응 및 조절 연구: 추가로, 종양 성장 및 생존에 대한 작용에 책임이 있는 면역 조절의 구체적인 기전을 종양, 비장, 및 종양 배액 림프절(tumor draining lymph node, TDLN)에서 조사한다. 이들 실험에서, 마우스를 그룹화하고(4 마우스/그룹) 위에서와 유사하게 처치
하고 제2 면역화 6 일 후 및 제3 면역화 1 주일 후 희생시킨다. 종양, 비장, TDLN을 수확하고 다음 분석을 수행한다:
본 발명의 소정의 특징들이 이에 예시되고 기술되었지만, 해당 분야의 당업자에게는 많은 변형, 치환, 변경 및 등가물이 이제 떠오를 것이다. 따라서, 첨부된 청구범위는 본 발명의 진정한 사상 내에 들어오는 이러한 모든 변형 및 변경을 포함하도록 의도된다.
SEQUENCE LISTING
<110> Advaxis, Inc.
KHLEIF, Samir
MKRTICHYAN, Mikayel
<120> COMBINATION OF LISTERIA-BASED VACCINE WITH ANTI-OX40 OR ANTI-GITR
ANTIBODIES
<130> P-78657-PC
<150> 62/094,472
<151> 2014-12-19
<150> 62/094,349
<151> 2014-12-19
<150> 62/147,463
<151> 2015-04-14
<150> 62/262,896
<151> 2015-12-03
<160> 89
<170> PatentIn version 3.5
<210> 1
<211> 32
<212> PRT
<213> Artificial Sequence
<220>
<223> PEST sequence
<400> 1
Lys Glu Asn Ser Ile Ser Ser Met Ala Pro Pro Ala Ser Pro Pro Ala
1 5 10 15
Ser Pro Lys Thr Pro Ile Glu Lys Lys His Ala Asp Glu Ile Asp Lys
20 25 30
<210> 2
<211> 529
<212> PRT
<213> Artificial Sequence
<220>
<223> GenBank Accession No. P13128
<400> 2
Met Lys Lys Ile Met Leu Val Phe Ile Thr Leu Ile Leu Val Ser Leu
1 5 10 15
Pro Ile Ala Gln Gln Thr Glu Ala Lys Asp Ala Ser Ala Phe Asn Lys
20 25 30
Glu Asn Ser Ile Ser Ser Met Ala Pro Pro Ala Ser Pro Pro Ala Ser
35 40 45
Pro Lys Thr Pro Ile Glu Lys Lys His Ala Asp Glu Ile Asp Lys Tyr
50 55 60
Ile Gln Gly Leu Asp Tyr Asn Lys Asn Asn Val Leu Val Tyr His Gly
65 70 75 80
Asp Ala Val Thr Asn Val Pro Pro Arg Lys Gly Tyr Lys Asp Gly Asn
85 90 95
Glu Tyr Ile Val Val Glu Lys Lys Lys Lys Ser Ile Asn Gln Asn Asn
100 105 110
Ala Asp Ile Gln Val Val Asn Ala Ile Ser Ser Leu Thr Tyr Pro Gly
115 120 125
Ala Leu Val Lys Ala Asn Ser Glu Leu Val Glu Asn Gln Pro Asp Val
130 135 140
Leu Pro Val Lys Arg Asp Ser Leu Thr Leu Ser Ile Asp Leu Pro Gly
145 150 155 160
Met Thr Asn Gln Asp Asn Lys Ile Val Val Lys Asn Ala Thr Lys Ser
165 170 175
Asn Val Asn Asn Ala Val Asn Thr Leu Val Glu Arg Trp Asn Glu Lys
180 185 190
Tyr Ala Gln Ala Tyr Pro Asn Val Ser Ala Lys Ile Asp Tyr Asp Asp
195 200 205
Glu Met Ala Tyr Ser Glu Ser Gln Leu Ile Ala Lys Phe Gly Thr Ala
210 215 220
Phe Lys Ala Val Asn Asn Ser Leu Asn Val Asn Phe Gly Ala Ile Ser
225 230 235 240
Glu Gly Lys Met Gln Glu Glu Val Ile Ser Phe Lys Gln Ile Tyr Tyr
245 250 255
Asn Val Asn Val Asn Glu Pro Thr Arg Pro Ser Arg Phe Phe Gly Lys
260 265 270
Ala Val Thr Lys Glu Gln Leu Gln Ala Leu Gly Val Asn Ala Glu Asn
275 280 285
Pro Pro Ala Tyr Ile Ser Ser Val Ala Tyr Gly Arg Gln Val Tyr Leu
290 295 300
Lys Leu Ser Thr Asn Ser His Ser Thr Lys Val Lys Ala Ala Phe Asp
305 310 315 320
Ala Ala Val Ser Gly Lys Ser Val Ser Gly Asp Val Glu Leu Thr Asn
325 330 335
Ile Ile Lys Asn Ser Ser Phe Lys Ala Val Ile Tyr Gly Gly Ser Ala
340 345 350
Lys Asp Glu Val Gln Ile Ile Asp Gly Asn Leu Gly Asp Leu Arg Asp
355 360 365
Ile Leu Lys Lys Gly Ala Thr Phe Asn Arg Glu Thr Pro Gly Val Pro
370 375 380
Ile Ala Tyr Thr Thr Asn Phe Leu Lys Asp Asn Glu Leu Ala Val Ile
385 390 395 400
Lys Asn Asn Ser Glu Tyr Ile Glu Thr Thr Ser Lys Ala Tyr Thr Asp
405 410 415
Gly Lys Ile Asn Ile Asp His Ser Gly Gly Tyr Val Ala Gln Phe Asn
420 425 430
Ile Ser Trp Asp Glu Val Asn Tyr Asp Pro Glu Gly Asn Glu Ile Val
435 440 445
Gln His Lys Asn Trp Ser Glu Asn Asn Lys Ser Lys Leu Ala His Phe
450 455 460
Thr Ser Ser Ile Tyr Leu Pro Gly Asn Ala Arg Asn Ile Asn Val Tyr
465 470 475 480
Ala Lys Glu Cys Thr Gly Leu Ala Trp Glu Trp Trp Arg Thr Val Ile
485 490 495
Asp Asp Arg Asn Leu Pro Leu Val Lys Asn Arg Asn Ile Ser Ile Trp
500 505 510
Gly Thr Thr Leu Tyr Pro Lys Tyr Ser Asn Lys Val Asp Asn Pro Ile
515 520 525
Glu
<210> 3
<211> 441
<212> PRT
<213> Artificial Sequence
<220>
<223> N-terminal fragment of an LLO protein
<400> 3
Met Lys Lys Ile Met Leu Val Phe Ile Thr Leu Ile Leu Val Ser Leu
1 5 10 15
Pro Ile Ala Gln Gln Thr Glu Ala Lys Asp Ala Ser Ala Phe Asn Lys
20 25 30
Glu Asn Ser Ile Ser Ser Val Ala Pro Pro Ala Ser Pro Pro Ala Ser
35 40 45
Pro Lys Thr Pro Ile Glu Lys Lys His Ala Asp Glu Ile Asp Lys Tyr
50 55 60
Ile Gln Gly Leu Asp Tyr Asn Lys Asn Asn Val Leu Val Tyr His Gly
65 70 75 80
Asp Ala Val Thr Asn Val Pro Pro Arg Lys Gly Tyr Lys Asp Gly Asn
85 90 95
Glu Tyr Ile Val Val Glu Lys Lys Lys Lys Ser Ile Asn Gln Asn Asn
100 105 110
Ala Asp Ile Gln Val Val Asn Ala Ile Ser Ser Leu Thr Tyr Pro Gly
115 120 125
Ala Leu Val Lys Ala Asn Ser Glu Leu Val Glu Asn Gln Pro Asp Val
130 135 140
Leu Pro Val Lys Arg Asp Ser Leu Thr Leu Ser Ile Asp Leu Pro Gly
145 150 155 160
Met Thr Asn Gln Asp Asn Lys Ile Val Val Lys Asn Ala Thr Lys Ser
165 170 175
Asn Val Asn Asn Ala Val Asn Thr Leu Val Glu Arg Trp Asn Glu Lys
180 185 190
Tyr Ala Gln Ala Tyr Ser Asn Val Ser Ala Lys Ile Asp Tyr Asp Asp
195 200 205
Glu Met Ala Tyr Ser Glu Ser Gln Leu Ile Ala Lys Phe Gly Thr Ala
210 215 220
Phe Lys Ala Val Asn Asn Ser Leu Asn Val Asn Phe Gly Ala Ile Ser
225 230 235 240
Glu Gly Lys Met Gln Glu Glu Val Ile Ser Phe Lys Gln Ile Tyr Tyr
245 250 255
Asn Val Asn Val Asn Glu Pro Thr Arg Pro Ser Arg Phe Phe Gly Lys
260 265 270
Ala Val Thr Lys Glu Gln Leu Gln Ala Leu Gly Val Asn Ala Glu Asn
275 280 285
Pro Pro Ala Tyr Ile Ser Ser Val Ala Tyr Gly Arg Gln Val Tyr Leu
290 295 300
Lys Leu Ser Thr Asn Ser His Ser Thr Lys Val Lys Ala Ala Phe Asp
305 310 315 320
Ala Ala Val Ser Gly Lys Ser Val Ser Gly Asp Val Glu Leu Thr Asn
325 330 335
Ile Ile Lys Asn Ser Ser Phe Lys Ala Val Ile Tyr Gly Gly Ser Ala
340 345 350
Lys Asp Glu Val Gln Ile Ile Asp Gly Asn Leu Gly Asp Leu Arg Asp
355 360 365
Ile Leu Lys Lys Gly Ala Thr Phe Asn Arg Glu Thr Pro Gly Val Pro
370 375 380
Ile Ala Tyr Thr Thr Asn Phe Leu Lys Asp Asn Glu Leu Ala Val Ile
385 390 395 400
Lys Asn Asn Ser Glu Tyr Ile Glu Thr Thr Ser Lys Ala Tyr Thr Asp
405 410 415
Gly Lys Ile Asn Ile Asp His Ser Gly Gly Tyr Val Ala Gln Phe Asn
420 425 430
Ile Ser Trp Asp Glu Val Asn Tyr Asp
435 440
<210> 4
<211> 416
<212> PRT
<213> Artificial Sequence
<220>
<223> LLO fragment
<400> 4
Met Lys Lys Ile Met Leu Val Phe Ile Thr Leu Ile Leu Val Ser Leu
1 5 10 15
Pro Ile Ala Gln Gln Thr Glu Ala Lys Asp Ala Ser Ala Phe Asn Lys
20 25 30
Glu Asn Ser Ile Ser Ser Val Ala Pro Pro Ala Ser Pro Pro Ala Ser
35 40 45
Pro Lys Thr Pro Ile Glu Lys Lys His Ala Asp Glu Ile Asp Lys Tyr
50 55 60
Ile Gln Gly Leu Asp Tyr Asn Lys Asn Asn Val Leu Val Tyr His Gly
65 70 75 80
Asp Ala Val Thr Asn Val Pro Pro Arg Lys Gly Tyr Lys Asp Gly Asn
85 90 95
Glu Tyr Ile Val Val Glu Lys Lys Lys Lys Ser Ile Asn Gln Asn Asn
100 105 110
Ala Asp Ile Gln Val Val Asn Ala Ile Ser Ser Leu Thr Tyr Pro Gly
115 120 125
Ala Leu Val Lys Ala Asn Ser Glu Leu Val Glu Asn Gln Pro Asp Val
130 135 140
Leu Pro Val Lys Arg Asp Ser Leu Thr Leu Ser Ile Asp Leu Pro Gly
145 150 155 160
Met Thr Asn Gln Asp Asn Lys Ile Val Val Lys Asn Ala Thr Lys Ser
165 170 175
Asn Val Asn Asn Ala Val Asn Thr Leu Val Glu Arg Trp Asn Glu Lys
180 185 190
Tyr Ala Gln Ala Tyr Ser Asn Val Ser Ala Lys Ile Asp Tyr Asp Asp
195 200 205
Glu Met Ala Tyr Ser Glu Ser Gln Leu Ile Ala Lys Phe Gly Thr Ala
210 215 220
Phe Lys Ala Val Asn Asn Ser Leu Asn Val Asn Phe Gly Ala Ile Ser
225 230 235 240
Glu Gly Lys Met Gln Glu Glu Val Ile Ser Phe Lys Gln Ile Tyr Tyr
245 250 255
Asn Val Asn Val Asn Glu Pro Thr Arg Pro Ser Arg Phe Phe Gly Lys
260 265 270
Ala Val Thr Lys Glu Gln Leu Gln Ala Leu Gly Val Asn Ala Glu Asn
275 280 285
Pro Pro Ala Tyr Ile Ser Ser Val Ala Tyr Gly Arg Gln Val Tyr Leu
290 295 300
Lys Leu Ser Thr Asn Ser His Ser Thr Lys Val Lys Ala Ala Phe Asp
305 310 315 320
Ala Ala Val Ser Gly Lys Ser Val Ser Gly Asp Val Glu Leu Thr Asn
325 330 335
Ile Ile Lys Asn Ser Ser Phe Lys Ala Val Ile Tyr Gly Gly Ser Ala
340 345 350
Lys Asp Glu Val Gln Ile Ile Asp Gly Asn Leu Gly Asp Leu Arg Asp
355 360 365
Ile Leu Lys Lys Gly Ala Thr Phe Asn Arg Glu Thr Pro Gly Val Pro
370 375 380
Ile Ala Tyr Thr Thr Asn Phe Leu Lys Asp Asn Glu Leu Ala Val Ile
385 390 395 400
Lys Asn Asn Ser Glu Tyr Ile Glu Thr Thr Ser Lys Ala Tyr Thr Asp
405 410 415
<210> 5
<211> 14
<212> PRT
<213> Artificial Sequence
<220>
<223> PEST sequence
<400> 5
Lys Thr Glu Glu Gln Pro Ser Glu Val Asn Thr Gly Pro Arg
1 5 10
<210> 6
<211> 28
<212> PRT
<213> Artificial Sequence
<220>
<223> PEST sequence
<400> 6
Lys Ala Ser Val Thr Asp Thr Ser Glu Gly Asp Leu Asp Ser Ser Met
1 5 10 15
Gln Ser Ala Asp Glu Ser Thr Pro Gln Pro Leu Lys
20 25
<210> 7
<211> 20
<212> PRT
<213> Artificial Sequence
<220>
<223> PEST sequence
<400> 7
Lys Asn Glu Glu Val Asn Ala Ser Asp Phe Pro Pro Pro Pro Thr Asp
1 5 10 15
Glu Glu Leu Arg
20
<210> 8
<211> 33
<212> PRT
<213> Artificial Sequence
<220>
<223> PEST sequence
<400> 8
Arg Gly Gly Ile Pro Thr Ser Glu Glu Phe Ser Ser Leu Asn Ser Gly
1 5 10 15
Asp Phe Thr Asp Asp Glu Asn Ser Glu Thr Thr Glu Glu Glu Ile Asp
20 25 30
Arg
<210> 9
<211> 17
<212> PRT
<213> Artificial Sequence
<220>
<223> PEST sequence
<400> 9
Lys Gln Asn Thr Ala Ser Thr Glu Thr Thr Thr Thr Asn Glu Gln Pro
1 5 10 15
Lys
<210> 10
<211> 17
<212> PRT
<213> Artificial Sequence
<220>
<223> PEST sequence
<400> 10
Lys Gln Asn Thr Ala Asn Thr Glu Thr Thr Thr Thr Asn Glu Gln Pro
1 5 10 15
Lys
<210> 11
<211> 639
<212> PRT
<213> Artificial Sequence
<220>
<223> ActA protein
<400> 11
Met Gly Leu Asn Arg Phe Met Arg Ala Met Met Val Val Phe Ile Thr
1 5 10 15
Ala Asn Cys Ile Thr Ile Asn Pro Asp Ile Ile Phe Ala Ala Thr Asp
20 25 30
Ser Glu Asp Ser Ser Leu Asn Thr Asp Glu Trp Glu Glu Glu Lys Thr
35 40 45
Glu Glu Gln Pro Ser Glu Val Asn Thr Gly Pro Arg Tyr Glu Thr Ala
50 55 60
Arg Glu Val Ser Ser Arg Asp Ile Lys Glu Leu Glu Lys Ser Asn Lys
65 70 75 80
Val Arg Asn Thr Asn Lys Ala Asp Leu Ile Ala Met Leu Lys Glu Lys
85 90 95
Ala Glu Lys Gly Pro Asn Ile Asn Asn Asn Asn Ser Glu Gln Thr Glu
100 105 110
Asn Ala Ala Ile Asn Glu Glu Ala Ser Gly Ala Asp Arg Pro Ala Ile
115 120 125
Gln Val Glu Arg Arg His Pro Gly Leu Pro Ser Asp Ser Ala Ala Glu
130 135 140
Ile Lys Lys Arg Arg Lys Ala Ile Ala Ser Ser Asp Ser Glu Leu Glu
145 150 155 160
Ser Leu Thr Tyr Pro Asp Lys Pro Thr Lys Val Asn Lys Lys Lys Val
165 170 175
Ala Lys Glu Ser Val Ala Asp Ala Ser Glu Ser Asp Leu Asp Ser Ser
180 185 190
Met Gln Ser Ala Asp Glu Ser Ser Pro Gln Pro Leu Lys Ala Asn Gln
195 200 205
Gln Pro Phe Phe Pro Lys Val Phe Lys Lys Ile Lys Asp Ala Gly Lys
210 215 220
Trp Val Arg Asp Lys Ile Asp Glu Asn Pro Glu Val Lys Lys Ala Ile
225 230 235 240
Val Asp Lys Ser Ala Gly Leu Ile Asp Gln Leu Leu Thr Lys Lys Lys
245 250 255
Ser Glu Glu Val Asn Ala Ser Asp Phe Pro Pro Pro Pro Thr Asp Glu
260 265 270
Glu Leu Arg Leu Ala Leu Pro Glu Thr Pro Met Leu Leu Gly Phe Asn
275 280 285
Ala Pro Ala Thr Ser Glu Pro Ser Ser Phe Glu Phe Pro Pro Pro Pro
290 295 300
Thr Asp Glu Glu Leu Arg Leu Ala Leu Pro Glu Thr Pro Met Leu Leu
305 310 315 320
Gly Phe Asn Ala Pro Ala Thr Ser Glu Pro Ser Ser Phe Glu Phe Pro
325 330 335
Pro Pro Pro Thr Glu Asp Glu Leu Glu Ile Ile Arg Glu Thr Ala Ser
340 345 350
Ser Leu Asp Ser Ser Phe Thr Arg Gly Asp Leu Ala Ser Leu Arg Asn
355 360 365
Ala Ile Asn Arg His Ser Gln Asn Phe Ser Asp Phe Pro Pro Ile Pro
370 375 380
Thr Glu Glu Glu Leu Asn Gly Arg Gly Gly Arg Pro Thr Ser Glu Glu
385 390 395 400
Phe Ser Ser Leu Asn Ser Gly Asp Phe Thr Asp Asp Glu Asn Ser Glu
405 410 415
Thr Thr Glu Glu Glu Ile Asp Arg Leu Ala Asp Leu Arg Asp Arg Gly
420 425 430
Thr Gly Lys His Ser Arg Asn Ala Gly Phe Leu Pro Leu Asn Pro Phe
435 440 445
Ala Ser Ser Pro Val Pro Ser Leu Ser Pro Lys Val Ser Lys Ile Ser
450 455 460
Asp Arg Ala Leu Ile Ser Asp Ile Thr Lys Lys Thr Pro Phe Lys Asn
465 470 475 480
Pro Ser Gln Pro Leu Asn Val Phe Asn Lys Lys Thr Thr Thr Lys Thr
485 490 495
Val Thr Lys Lys Pro Thr Pro Val Lys Thr Ala Pro Lys Leu Ala Glu
500 505 510
Leu Pro Ala Thr Lys Pro Gln Glu Thr Val Leu Arg Glu Asn Lys Thr
515 520 525
Pro Phe Ile Glu Lys Gln Ala Glu Thr Asn Lys Gln Ser Ile Asn Met
530 535 540
Pro Ser Leu Pro Val Ile Gln Lys Glu Ala Thr Glu Ser Asp Lys Glu
545 550 555 560
Glu Met Lys Pro Gln Thr Glu Glu Lys Met Val Glu Glu Ser Glu Ser
565 570 575
Ala Asn Asn Ala Asn Gly Lys Asn Arg Ser Ala Gly Ile Glu Glu Gly
580 585 590
Lys Leu Ile Ala Lys Ser Ala Glu Asp Glu Lys Ala Lys Glu Glu Pro
595 600 605
Gly Asn His Thr Thr Leu Ile Leu Ala Met Leu Ala Ile Gly Val Phe
610 615 620
Ser Leu Gly Ala Phe Ile Lys Ile Ile Gln Leu Arg Lys Asn Asn
625 630 635
<210> 12
<211> 390
<212> PRT
<213> Artificial Sequence
<220>
<223> a truncated ActA protein
<400> 12
Met Arg Ala Met Met Val Val Phe Ile Thr Ala Asn Cys Ile Thr Ile
1 5 10 15
Asn Pro Asp Ile Ile Phe Ala Ala Thr Asp Ser Glu Asp Ser Ser Leu
20 25 30
Asn Thr Asp Glu Trp Glu Glu Glu Lys Thr Glu Glu Gln Pro Ser Glu
35 40 45
Val Asn Thr Gly Pro Arg Tyr Glu Thr Ala Arg Glu Val Ser Ser Arg
50 55 60
Asp Ile Lys Glu Leu Glu Lys Ser Asn Lys Val Arg Asn Thr Asn Lys
65 70 75 80
Ala Asp Leu Ile Ala Met Leu Lys Glu Lys Ala Glu Lys Gly Pro Asn
85 90 95
Ile Asn Asn Asn Asn Ser Glu Gln Thr Glu Asn Ala Ala Ile Asn Glu
100 105 110
Glu Ala Ser Gly Ala Asp Arg Pro Ala Ile Gln Val Glu Arg Arg His
115 120 125
Pro Gly Leu Pro Ser Asp Ser Ala Ala Glu Ile Lys Lys Arg Arg Lys
130 135 140
Ala Ile Ala Ser Ser Asp Ser Glu Leu Glu Ser Leu Thr Tyr Pro Asp
145 150 155 160
Lys Pro Thr Lys Val Asn Lys Lys Lys Val Ala Lys Glu Ser Val Ala
165 170 175
Asp Ala Ser Glu Ser Asp Leu Asp Ser Ser Met Gln Ser Ala Asp Glu
180 185 190
Ser Ser Pro Gln Pro Leu Lys Ala Asn Gln Gln Pro Phe Phe Pro Lys
195 200 205
Val Phe Lys Lys Ile Lys Asp Ala Gly Lys Trp Val Arg Asp Lys Ile
210 215 220
Asp Glu Asn Pro Glu Val Lys Lys Ala Ile Val Asp Lys Ser Ala Gly
225 230 235 240
Leu Ile Asp Gln Leu Leu Thr Lys Lys Lys Ser Glu Glu Val Asn Ala
245 250 255
Ser Asp Phe Pro Pro Pro Pro Thr Asp Glu Glu Leu Arg Leu Ala Leu
260 265 270
Pro Glu Thr Pro Met Leu Leu Gly Phe Asn Ala Pro Ala Thr Ser Glu
275 280 285
Pro Ser Ser Phe Glu Phe Pro Pro Pro Pro Thr Asp Glu Glu Leu Arg
290 295 300
Leu Ala Leu Pro Glu Thr Pro Met Leu Leu Gly Phe Asn Ala Pro Ala
305 310 315 320
Thr Ser Glu Pro Ser Ser Phe Glu Phe Pro Pro Pro Pro Thr Glu Asp
325 330 335
Glu Leu Glu Ile Ile Arg Glu Thr Ala Ser Ser Leu Asp Ser Ser Phe
340 345 350
Thr Arg Gly Asp Leu Ala Ser Leu Arg Asn Ala Ile Asn Arg His Ser
355 360 365
Gln Asn Phe Ser Asp Phe Pro Pro Ile Pro Thr Glu Glu Glu Leu Asn
370 375 380
Gly Arg Gly Gly Arg Pro
385 390
<210> 13
<211> 100
<212> PRT
<213> Artificial Sequence
<220>
<223> truncated ActA protein
<400> 13
Met Gly Leu Asn Arg Phe Met Arg Ala Met Met Val Val Phe Ile Thr
1 5 10 15
Ala Asn Cys Ile Thr Ile Asn Pro Asp Ile Ile Phe Ala Ala Thr Asp
20 25 30
Ser Glu Asp Ser Ser Leu Asn Thr Asp Glu Trp Glu Glu Glu Lys Thr
35 40 45
Glu Glu Gln Pro Ser Glu Val Asn Thr Gly Pro Arg Tyr Glu Thr Ala
50 55 60
Arg Glu Val Ser Ser Arg Asp Ile Lys Glu Leu Glu Lys Ser Asn Lys
65 70 75 80
Val Arg Asn Thr Asn Lys Ala Asp Leu Ile Ala Met Leu Lys Glu Lys
85 90 95
Ala Glu Lys Gly
100
<210> 14
<211> 1170
<212> PRT
<213> Artificial Sequence
<220>
<223> recombinant nucleotide encoding a truncated ActA protein
<400> 14
Ala Thr Gly Cys Gly Thr Gly Cys Gly Ala Thr Gly Ala Thr Gly Gly
1 5 10 15
Thr Gly Gly Thr Thr Thr Thr Cys Ala Thr Thr Ala Cys Thr Gly Cys
20 25 30
Cys Ala Ala Thr Thr Gly Cys Ala Thr Thr Ala Cys Gly Ala Thr Thr
35 40 45
Ala Ala Cys Cys Cys Cys Gly Ala Cys Ala Thr Ala Ala Thr Ala Thr
50 55 60
Thr Thr Gly Cys Ala Gly Cys Gly Ala Cys Ala Gly Ala Thr Ala Gly
65 70 75 80
Cys Gly Ala Ala Gly Ala Thr Thr Cys Thr Ala Gly Thr Cys Thr Ala
85 90 95
Ala Ala Cys Ala Cys Ala Gly Ala Thr Gly Ala Ala Thr Gly Gly Gly
100 105 110
Ala Ala Gly Ala Ala Gly Ala Ala Ala Ala Ala Ala Cys Ala Gly Ala
115 120 125
Ala Gly Ala Gly Cys Ala Ala Cys Cys Ala Ala Gly Cys Gly Ala Gly
130 135 140
Gly Thr Ala Ala Ala Thr Ala Cys Gly Gly Gly Ala Cys Cys Ala Ala
145 150 155 160
Gly Ala Thr Ala Cys Gly Ala Ala Ala Cys Thr Gly Cys Ala Cys Gly
165 170 175
Thr Gly Ala Ala Gly Thr Ala Ala Gly Thr Thr Cys Ala Cys Gly Thr
180 185 190
Gly Ala Thr Ala Thr Thr Ala Ala Ala Gly Ala Ala Cys Thr Ala Gly
195 200 205
Ala Ala Ala Ala Ala Thr Cys Gly Ala Ala Thr Ala Ala Ala Gly Thr
210 215 220
Gly Ala Gly Ala Ala Ala Thr Ala Cys Gly Ala Ala Cys Ala Ala Ala
225 230 235 240
Gly Cys Ala Gly Ala Cys Cys Thr Ala Ala Thr Ala Gly Cys Ala Ala
245 250 255
Thr Gly Thr Thr Gly Ala Ala Ala Gly Ala Ala Ala Ala Ala Gly Cys
260 265 270
Ala Gly Ala Ala Ala Ala Ala Gly Gly Thr Cys Cys Ala Ala Ala Thr
275 280 285
Ala Thr Cys Ala Ala Thr Ala Ala Thr Ala Ala Cys Ala Ala Cys Ala
290 295 300
Gly Thr Gly Ala Ala Cys Ala Ala Ala Cys Thr Gly Ala Gly Ala Ala
305 310 315 320
Thr Gly Cys Gly Gly Cys Thr Ala Thr Ala Ala Ala Thr Gly Ala Ala
325 330 335
Gly Ala Gly Gly Cys Thr Thr Cys Ala Gly Gly Ala Gly Cys Cys Gly
340 345 350
Ala Cys Cys Gly Ala Cys Cys Ala Gly Cys Thr Ala Thr Ala Cys Ala
355 360 365
Ala Gly Thr Gly Gly Ala Gly Cys Gly Thr Cys Gly Thr Cys Ala Thr
370 375 380
Cys Cys Ala Gly Gly Ala Thr Thr Gly Cys Cys Ala Thr Cys Gly Gly
385 390 395 400
Ala Thr Ala Gly Cys Gly Cys Ala Gly Cys Gly Gly Ala Ala Ala Thr
405 410 415
Thr Ala Ala Ala Ala Ala Ala Ala Gly Ala Ala Gly Gly Ala Ala Ala
420 425 430
Gly Cys Cys Ala Thr Ala Gly Cys Ala Thr Cys Ala Thr Cys Gly Gly
435 440 445
Ala Thr Ala Gly Thr Gly Ala Gly Cys Thr Thr Gly Ala Ala Ala Gly
450 455 460
Cys Cys Thr Thr Ala Cys Thr Thr Ala Thr Cys Cys Gly Gly Ala Thr
465 470 475 480
Ala Ala Ala Cys Cys Ala Ala Cys Ala Ala Ala Ala Gly Thr Ala Ala
485 490 495
Ala Thr Ala Ala Gly Ala Ala Ala Ala Ala Ala Gly Thr Gly Gly Cys
500 505 510
Gly Ala Ala Ala Gly Ala Gly Thr Cys Ala Gly Thr Thr Gly Cys Gly
515 520 525
Gly Ala Thr Gly Cys Thr Thr Cys Thr Gly Ala Ala Ala Gly Thr Gly
530 535 540
Ala Cys Thr Thr Ala Gly Ala Thr Thr Cys Thr Ala Gly Cys Ala Thr
545 550 555 560
Gly Cys Ala Gly Thr Cys Ala Gly Cys Ala Gly Ala Thr Gly Ala Gly
565 570 575
Thr Cys Thr Thr Cys Ala Cys Cys Ala Cys Ala Ala Cys Cys Thr Thr
580 585 590
Thr Ala Ala Ala Ala Gly Cys Ala Ala Ala Cys Cys Ala Ala Cys Ala
595 600 605
Ala Cys Cys Ala Thr Thr Thr Thr Thr Cys Cys Cys Thr Ala Ala Ala
610 615 620
Gly Thr Ala Thr Thr Thr Ala Ala Ala Ala Ala Ala Ala Thr Ala Ala
625 630 635 640
Ala Ala Gly Ala Thr Gly Cys Gly Gly Gly Gly Ala Ala Ala Thr Gly
645 650 655
Gly Gly Thr Ala Cys Gly Thr Gly Ala Thr Ala Ala Ala Ala Thr Cys
660 665 670
Gly Ala Cys Gly Ala Ala Ala Ala Thr Cys Cys Thr Gly Ala Ala Gly
675 680 685
Thr Ala Ala Ala Gly Ala Ala Ala Gly Cys Gly Ala Thr Thr Gly Thr
690 695 700
Thr Gly Ala Thr Ala Ala Ala Ala Gly Thr Gly Cys Ala Gly Gly Gly
705 710 715 720
Thr Thr Ala Ala Thr Thr Gly Ala Cys Cys Ala Ala Thr Thr Ala Thr
725 730 735
Thr Ala Ala Cys Cys Ala Ala Ala Ala Ala Gly Ala Ala Ala Ala Gly
740 745 750
Thr Gly Ala Ala Gly Ala Gly Gly Thr Ala Ala Ala Thr Gly Cys Thr
755 760 765
Thr Cys Gly Gly Ala Cys Thr Thr Cys Cys Cys Gly Cys Cys Ala Cys
770 775 780
Cys Ala Cys Cys Thr Ala Cys Gly Gly Ala Thr Gly Ala Ala Gly Ala
785 790 795 800
Gly Thr Thr Ala Ala Gly Ala Cys Thr Thr Gly Cys Thr Thr Thr Gly
805 810 815
Cys Cys Ala Gly Ala Gly Ala Cys Ala Cys Cys Ala Ala Thr Gly Cys
820 825 830
Thr Thr Cys Thr Thr Gly Gly Thr Thr Thr Thr Ala Ala Thr Gly Cys
835 840 845
Thr Cys Cys Thr Gly Cys Thr Ala Cys Ala Thr Cys Ala Gly Ala Ala
850 855 860
Cys Cys Gly Ala Gly Cys Thr Cys Ala Thr Thr Cys Gly Ala Ala Thr
865 870 875 880
Thr Thr Cys Cys Ala Cys Cys Ala Cys Cys Ala Cys Cys Thr Ala Cys
885 890 895
Gly Gly Ala Thr Gly Ala Ala Gly Ala Gly Thr Thr Ala Ala Gly Ala
900 905 910
Cys Thr Thr Gly Cys Thr Thr Thr Gly Cys Cys Ala Gly Ala Gly Ala
915 920 925
Cys Gly Cys Cys Ala Ala Thr Gly Cys Thr Thr Cys Thr Thr Gly Gly
930 935 940
Thr Thr Thr Thr Ala Ala Thr Gly Cys Thr Cys Cys Thr Gly Cys Thr
945 950 955 960
Ala Cys Ala Thr Cys Gly Gly Ala Ala Cys Cys Gly Ala Gly Cys Thr
965 970 975
Cys Gly Thr Thr Cys Gly Ala Ala Thr Thr Thr Cys Cys Ala Cys Cys
980 985 990
Gly Cys Cys Thr Cys Cys Ala Ala Cys Ala Gly Ala Ala Gly Ala Thr
995 1000 1005
Gly Ala Ala Cys Thr Ala Gly Ala Ala Ala Thr Cys Ala Thr Cys
1010 1015 1020
Cys Gly Gly Gly Ala Ala Ala Cys Ala Gly Cys Ala Thr Cys Cys
1025 1030 1035
Thr Cys Gly Cys Thr Ala Gly Ala Thr Thr Cys Thr Ala Gly Thr
1040 1045 1050
Thr Thr Thr Ala Cys Ala Ala Gly Ala Gly Gly Gly Gly Ala Thr
1055 1060 1065
Thr Thr Ala Gly Cys Thr Ala Gly Thr Thr Thr Gly Ala Gly Ala
1070 1075 1080
Ala Ala Thr Gly Cys Thr Ala Thr Thr Ala Ala Thr Cys Gly Cys
1085 1090 1095
Cys Ala Thr Ala Gly Thr Cys Ala Ala Ala Ala Thr Thr Thr Cys
1100 1105 1110
Thr Cys Thr Gly Ala Thr Thr Thr Cys Cys Cys Ala Cys Cys Ala
1115 1120 1125
Ala Thr Cys Cys Cys Ala Ala Cys Ala Gly Ala Ala Gly Ala Ala
1130 1135 1140
Gly Ala Gly Thr Thr Gly Ala Ala Cys Gly Gly Gly Ala Gly Ala
1145 1150 1155
Gly Gly Cys Gly Gly Thr Ala Gly Ala Cys Cys Ala
1160 1165 1170
<210> 15
<211> 261
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 15
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu Leu Arg Leu Ser Glu
115 120 125
Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met Asp Leu Pro Thr Gln
130 135 140
Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser Gly Trp Gly Ser Ile
145 150 155 160
Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu Gln Cys Val Asp Leu
165 170 175
His Val Ile Ser Asn Asp Val Cys Ala Gln Val His Pro Gln Lys Val
180 185 190
Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr Gly Gly Lys Ser Thr
195 200 205
Cys Ser Gly Asp Ser Gly Gly Pro Leu Val Cys Asn Gly Val Leu Gln
210 215 220
Gly Ile Thr Ser Trp Gly Ser Glu Pro Cys Ala Leu Pro Glu Arg Pro
225 230 235 240
Ser Leu Tyr Thr Lys Val Val His Tyr Arg Lys Trp Ile Lys Asp Thr
245 250 255
Ile Val Ala Asn Pro
260
<210> 16
<211> 237
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 16
Ile Val Gly Gly Trp Glu Cys Glu Lys His Ser Gln Pro Trp Gln Val
1 5 10 15
Leu Val Ala Ser Arg Gly Arg Ala Val Cys Gly Gly Val Leu Val His
20 25 30
Pro Gln Trp Val Leu Thr Ala Ala His Cys Ile Arg Asn Lys Ser Val
35 40 45
Ile Leu Leu Gly Arg His Ser Leu Phe His Pro Glu Asp Thr Gly Gln
50 55 60
Val Phe Gln Val Ser His Ser Phe Pro His Pro Leu Tyr Asp Met Ser
65 70 75 80
Leu Leu Lys Asn Arg Phe Leu Arg Pro Gly Asp Asp Ser Ser His Asp
85 90 95
Leu Met Leu Leu Arg Leu Ser Glu Pro Ala Glu Leu Thr Asp Ala Val
100 105 110
Lys Val Met Asp Leu Pro Thr Gln Glu Pro Ala Leu Gly Thr Thr Cys
115 120 125
Tyr Ala Ser Gly Trp Gly Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro
130 135 140
Lys Lys Leu Gln Cys Val Asp Leu His Val Ile Ser Asn Asp Val Cys
145 150 155 160
Ala Gln Val His Pro Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly
165 170 175
Arg Trp Thr Gly Gly Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro
180 185 190
Leu Val Cys Tyr Gly Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu
195 200 205
Pro Cys Ala Leu Pro Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His
210 215 220
Tyr Arg Lys Trp Ile Lys Asp Thr Ile Val Ala Asn Pro
225 230 235
<210> 17
<211> 237
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 17
Ile Val Gly Gly Trp Glu Cys Glu Lys His Ser Gln Pro Trp Gln Val
1 5 10 15
Leu Val Ala Ser Arg Gly Arg Ala Val Cys Gly Gly Val Leu Val His
20 25 30
Pro Gln Trp Val Leu Thr Ala Ala His Cys Ile Arg Asn Lys Ser Val
35 40 45
Ile Leu Leu Gly Arg His Ser Leu Phe His Pro Glu Asp Thr Gly Gln
50 55 60
Val Phe Gln Val Ser His Ser Phe Pro His Pro Leu Tyr Asp Met Ser
65 70 75 80
Leu Leu Lys Asn Arg Phe Leu Arg Pro Gly Asp Asp Ser Ser His Asp
85 90 95
Leu Met Leu Leu Arg Leu Ser Glu Pro Ala Glu Leu Thr Asp Ala Val
100 105 110
Lys Val Met Asp Leu Pro Thr Gln Glu Pro Ala Leu Gly Thr Thr Cys
115 120 125
Tyr Ala Ser Gly Trp Gly Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro
130 135 140
Lys Lys Leu Gln Cys Val Asp Leu His Val Ile Ser Asn Asp Val Cys
145 150 155 160
Ala Gln Val His Pro Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly
165 170 175
Arg Trp Thr Gly Gly Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro
180 185 190
Leu Val Cys Asn Gly Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu
195 200 205
Pro Cys Ala Leu Pro Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His
210 215 220
Tyr Arg Lys Trp Ile Lys Asp Thr Ile Val Ala Asn Pro
225 230 235
<210> 18
<211> 5873
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 18
ggtgtcttag gcacactggt cttggagtgc aaaggatcta ggcacgtgag gctttgtatg 60
aagaatcggg gatcgtaccc accccctgtt tctgtttcat cctgggcatg tctcctctgc 120
ctttgtcccc tagatgaagt ctccatgagc tacaagggcc tggtgcatcc agggtgatct 180
agtaattgca gaacagcaag tgctagctct ccctcccctt ccacagctct gggtgtggga 240
gggggttgtc cagcctccag cagcatgggg agggccttgg tcagcctctg ggtgccagca 300
gggcaggggc ggagtcctgg ggaatgaagg ttttataggg ctcctggggg aggctcccca 360
gccccaagct taccacctgc acccggagag ctgtgtcacc atgtgggtcc cggttgtctt 420
cctcaccctg tccgtgacgt ggattggtga gaggggccat ggttgggggg atgcaggaga 480
gggagccagc cctgactgtc aagctgaggc tctttccccc ccaacccagc accccagccc 540
agacagggag ctgggctctt ttctgtctct cccagcccca cttcaagccc atacccccag 600
tcccctccat attgcaacag tcctcactcc cacaccaggt ccccgctccc tcccacttac 660
cccagaactt tcttcccatt tgcccagcca gctccctgct cccagctgct ttactaaagg 720
ggaagttcct gggcatctcc gtgtttctct ttgtggggct caaaacctcc aaggacctct 780
ctcaatgcca ttggttcctt ggaccgtatc actggtccat ctcctgagcc cctcaatcct 840
atcacagtct actgactttt cccattcagc tgtgagtgtc caaccctatc ccagagacct 900
tgatgcttgg cctcccaatc ttgccctagg atacccagat gccaaccaga cacctccttc 960
tttcctagcc aggctatctg gcctgagaca acaaatgggt ccctcagtct ggcaatggga 1020
ctctgagaac tcctcattcc ctgactctta gccccagact cttcattcag tggcccacat 1080
tttccttagg aaaaacatga gcatccccag ccacaactgc cagctctctg agtccccaaa 1140
tctgcatcct tttcaaaacc taaaaacaaa aagaaaaaca aataaaacaa aaccaactca 1200
gaccagaact gttttctcaa cctgggactt cctaaacttt ccaaaacctt cctcttccag 1260
caactgaacc tcgccataag gcacttatcc ctggttccta gcacccctta tcccctcaga 1320
atccacaact tgtaccaagt ttcccttctc ccagtccaag accccaaatc accacaaagg 1380
acccaatccc cagactcaag atatggtctg ggcgctgtct tgtgtctcct accctgatcc 1440
ctgggttcaa ctctgctccc agagcatgaa gcctctccac cagcaccagc caccaacctg 1500
caaacctagg gaagattgac agaattccca gcctttccca gctccccctg cccatgtccc 1560
aggactccca gccttggttc tctgcccccg tgtcttttca aacccacatc ctaaatccat 1620
ctcctatccg agtcccccag ttccccctgt caaccctgat tcccctgatc tagcaccccc 1680
tctgcaggcg ctgcgcccct catcctgtct cggattgtgg gaggctggga gtgcgagaag 1740
cattcccaac cctggcaggt gcttgtggcc tctcgtggca gggcagtctg cggcggtgtt 1800
ctggtgcacc cccagtgggt cctcacagct gcccactgca tcaggaagtg agtaggggcc 1860
tggggtctgg ggagcaggtg tctgtgtccc agaggaataa cagctgggca ttttccccag 1920
gataacctct aaggccagcc ttgggactgg gggagagagg gaaagttctg gttcaggtca 1980
catggggagg cagggttggg gctggaccac cctccccatg gctgcctggg tctccatctg 2040
tgtccctcta tgtctctttg tgtcgctttc attatgtctc ttggtaactg gcttcggttg 2100
tgtctctccg tgtgactatt ttgttctctc tctccctctc ttctctgtct tcagtctcca 2160
tatctccccc tctctctgtc cttctctggt ccctctctag ccagtgtgtc tcaccctgta 2220
tctctctgcc aggctctgtc tctcggtctc tgtctcacct gtgccttctc cctactgaac 2280
acacgcacgg gatgggcctg ggggaccctg agaaaaggaa gggctttggc tgggcgcggt 2340
ggctcacacc tgtaatccca gcactttggg aggccaaggc aggtagatca cctgaggtca 2400
ggagttcgag accagcctgg ccaactggtg aaaccccatc tctactaaaa atacaaaaaa 2460
ttagccaggc gtggtggcgc atgcctgtag tcccagctac tcaggagctg agggaggaga 2520
attgcattga acctggaggt tgaggttgca gtgagccgag accgtgccac tgcactccag 2580
cctgggtgac agagtgagac tccgcctcaa aaaaaaaaaa aaaaaaaaaa aaaaaaaaga 2640
aaagaaaaga aaagaaaagg aagtgtttta tccctgatgt gtgtgggtat gagggtatga 2700
gagggcccct ctcactccat tccttctcca ggacatccct ccactcttgg gagacacaga 2760
gaagggctgg ttccagctgg agctgggagg ggcaattgag ggaggaggaa ggagaagggg 2820
gaaggaaaac agggtatggg ggaaaggacc ctggggagcg aagtggagga tacaaccttg 2880
ggcctgcagg caggctacct acccacttgg aaacccacgc caaagccgca tctacagctg 2940
agccactctg aggcctcccc tccccggcgg tccccactca gctccaaagt ctctctccct 3000
tttctctccc acactttatc atcccccgga ttcctctcta cttggttctc attcttcctt 3060
tgacttcctg cttccctttc tcattcatct gtttctcact ttctgcctgg ttttgttctt 3120
ctctctctct ttctctggcc catgtctgtt tctctatgtt tctgtctttt ctttctcatc 3180
ctgtgtattt tcggctcacc ttgtttgtca ctgttctccc ctctgccctt tcattctctc 3240
tgccctttta ccctcttcct tttcccttgg ttctctcagt tctgtatctg cccttcaccc 3300
tctcacactg ctgtttccca actcgttgtc tgtattttgg cctgaactgt gtcttcccaa 3360
ccctgtgttt tctcactgtt tctttttctc ttttggagcc tcctccttgc tcctctgtcc 3420
cttctctctt tccttatcat cctcgctcct cattcctgcg tctgcttcct ccccagcaaa 3480
agcgtgatct tgctgggtcg gcacagcctg tttcatcctg aagacacagg ccaggtattt 3540
caggtcagcc acagcttccc acacccgctc tacgatatga gcctcctgaa gaatcgattc 3600
ctcaggccag gtgatgactc cagccacgac ctcatgctgc tccgcctgtc agagcctgcc 3660
gagctcacgg atgctgtgaa ggtcatggac ctgcccaccc aggagccagc actggggacc 3720
acctgctacg cctcaggctg gggcagcatt gaaccagagg agtgtacgcc tgggccagat 3780
ggtgcagccg ggagcccaga tgcctgggtc tgagggagga ggggacagga ctcctgggtc 3840
tgagggagga gggccaagga accaggtggg gtccagccca caacagtgtt tttgcctggc 3900
ccgtagtctt gaccccaaag aaacttcagt gtgtggacct ccatgttatt tccaatgacg 3960
tgtgtgcgca agttcaccct cagaaggtga ccaagttcat gctgtgtgct ggacgctgga 4020
cagggggcaa aagcacctgc tcggtgagtc atccctactc ccaagatctt gagggaaagg 4080
tgagtgggac cttaattctg ggctggggtc tagaagccaa caaggcgtct gcctcccctg 4140
ctccccagct gtagccatgc cacctccccg tgtctcatct cattccctcc ttccctcttc 4200
tttgactccc tcaaggcaat aggttattct tacagcacaa ctcatctgtt cctgcgttca 4260
gcacacggtt actaggcacc tgctatgcac ccagcactgc cctagagcct gggacatagc 4320
agtgaacaga cagagagcag cccctccctt ctgtagcccc caagccagtg aggggcacag 4380
gcaggaacag ggaccacaac acagaaaagc tggagggtgt caggaggtga tcaggctctc 4440
ggggagggag aaggggtggg gagtgtgact gggaggagac atcctgcaga aggtgggagt 4500
gagcaaacac ctgcgcaggg gaggggaggg cctgcggcac ctgggggagc agagggaaca 4560
gcatctggcc aggcctggga ggaggggcct agagggcgtc aggagcagag aggaggttgc 4620
ctggctggag tgaaggatcg gggcagggtg cgagagggaa caaaggaccc ctcctgcagg 4680
gcctcacctg ggccacagga ggacactgct tttcctctga ggagtcagga actgtggatg 4740
gtgctggaca gaagcaggac agggcctggc tcaggtgtcc agaggctgcg ctggcctcct 4800
atgggatcag actgcaggga gggagggcag cagggatgtg gagggagtga tgatggggct 4860
gacctggggg tggctccagg cattgtcccc acctgggccc ttacccagcc tccctcacag 4920
gctcctggcc ctcagtctct cccctccact ccattctcca cctacccaca gtgggtcatt 4980
ctgatcaccg aactgaccat gccagccctg ccgatggtcc tccatggctc cctagtgccc 5040
tggagaggag gtgtctagtc agagagtagt cctggaaggt ggcctctgtg aggagccacg 5100
gggacagcat cctgcagatg gtcctggccc ttgtcccacc gacctgtcta caaggactgt 5160
cctcgtggac cctcccctct gcacaggagc tggaccctga agtcccttcc taccggccag 5220
gactggagcc cctacccctc tgttggaatc cctgcccacc ttcttctgga agtcggctct 5280
ggagacattt ctctcttctt ccaaagctgg gaactgctat ctgttatctg cctgtccagg 5340
tctgaaagat aggattgccc aggcagaaac tgggactgac ctatctcact ctctccctgc 5400
ttttaccctt agggtgattc tgggggccca cttgtctgta atggtgtgct tcaaggtatc 5460
acgtcatggg gcagtgaacc atgtgccctg cccgaaaggc cttccctgta caccaaggtg 5520
gtgcattacc ggaagtggat caaggacacc atcgtggcca acccctgagc acccctatca 5580
agtccctatt gtagtaaact tggaaccttg gaaatgacca ggccaagact caagcctccc 5640
cagttctact gacctttgtc cttaggtgtg aggtccaggg ttgctaggaa aagaaatcag 5700
cagacacagg tgtagaccag agtgtttctt aaatggtgta attttgtcct ctctgtgtcc 5760
tggggaatac tggccatgcc tggagacata tcactcaatt tctctgagga cacagttagg 5820
atggggtgtc tgtgttattt gtgggataca gagatgaaag aggggtggga tcc 5873
<210> 19
<211> 238
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 19
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu Leu Arg Leu Ser Glu
115 120 125
Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met Asp Leu Pro Thr Gln
130 135 140
Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser Gly Trp Gly Ser Ile
145 150 155 160
Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu Gln Cys Val Asp Leu
165 170 175
His Val Ile Ser Asn Asp Val Cys Ala Gln Val His Pro Gln Lys Val
180 185 190
Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr Gly Gly Lys Ser Thr
195 200 205
Cys Ser Trp Val Ile Leu Ile Thr Glu Leu Thr Met Pro Ala Leu Pro
210 215 220
Met Val Leu His Gly Ser Leu Val Pro Trp Arg Gly Gly Val
225 230 235
<210> 20
<211> 1906
<212> PRT
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 20
Ala Gly Cys Cys Cys Cys Ala Ala Gly Cys Thr Thr Ala Cys Cys Ala
1 5 10 15
Cys Cys Thr Gly Cys Ala Cys Cys Cys Gly Gly Ala Gly Ala Gly Cys
20 25 30
Thr Gly Thr Gly Thr Cys Ala Cys Cys Ala Thr Gly Thr Gly Gly Gly
35 40 45
Thr Cys Cys Cys Gly Gly Thr Thr Gly Thr Cys Thr Thr Cys Cys Thr
50 55 60
Cys Ala Cys Cys Cys Thr Gly Thr Cys Cys Gly Thr Gly Ala Cys Gly
65 70 75 80
Thr Gly Gly Ala Thr Thr Gly Gly Thr Gly Cys Thr Gly Cys Ala Cys
85 90 95
Cys Cys Cys Thr Cys Ala Thr Cys Cys Thr Gly Thr Cys Thr Cys Gly
100 105 110
Gly Ala Thr Thr Gly Thr Gly Gly Gly Ala Gly Gly Cys Thr Gly Gly
115 120 125
Gly Ala Gly Thr Gly Cys Gly Ala Gly Ala Ala Gly Cys Ala Thr Thr
130 135 140
Cys Cys Cys Ala Ala Cys Cys Cys Thr Gly Gly Cys Ala Gly Gly Thr
145 150 155 160
Gly Cys Thr Thr Gly Thr Gly Gly Cys Cys Thr Cys Thr Cys Gly Thr
165 170 175
Gly Gly Cys Ala Gly Gly Gly Cys Ala Gly Thr Cys Thr Gly Cys Gly
180 185 190
Gly Cys Gly Gly Thr Gly Thr Thr Cys Thr Gly Gly Thr Gly Cys Ala
195 200 205
Cys Cys Cys Cys Cys Ala Gly Thr Gly Gly Gly Thr Cys Cys Thr Cys
210 215 220
Ala Cys Ala Gly Cys Thr Gly Cys Cys Cys Ala Cys Thr Gly Cys Ala
225 230 235 240
Thr Cys Ala Gly Gly Ala Ala Cys Ala Ala Ala Ala Gly Cys Gly Thr
245 250 255
Gly Ala Thr Cys Thr Thr Gly Cys Thr Gly Gly Gly Thr Cys Gly Gly
260 265 270
Cys Ala Cys Ala Gly Cys Cys Thr Gly Thr Thr Thr Cys Ala Thr Cys
275 280 285
Cys Thr Gly Ala Ala Gly Ala Cys Ala Cys Ala Gly Gly Cys Cys Ala
290 295 300
Gly Gly Thr Ala Thr Thr Thr Cys Ala Gly Gly Thr Cys Ala Gly Cys
305 310 315 320
Cys Ala Cys Ala Gly Cys Thr Thr Cys Cys Cys Ala Cys Ala Cys Cys
325 330 335
Cys Gly Cys Thr Cys Thr Ala Cys Gly Ala Thr Ala Thr Gly Ala Gly
340 345 350
Cys Cys Thr Cys Cys Thr Gly Ala Ala Gly Ala Ala Thr Cys Gly Ala
355 360 365
Thr Thr Cys Cys Thr Cys Ala Gly Gly Cys Cys Ala Gly Gly Thr Gly
370 375 380
Ala Thr Gly Ala Cys Thr Cys Cys Ala Gly Cys Cys Ala Cys Gly Ala
385 390 395 400
Cys Cys Thr Cys Ala Thr Gly Cys Thr Gly Cys Thr Cys Cys Gly Cys
405 410 415
Cys Thr Gly Thr Cys Ala Gly Ala Gly Cys Cys Thr Gly Cys Cys Gly
420 425 430
Ala Gly Cys Thr Cys Ala Cys Gly Gly Ala Thr Gly Cys Thr Gly Thr
435 440 445
Gly Ala Ala Gly Gly Thr Cys Ala Thr Gly Gly Ala Cys Cys Thr Gly
450 455 460
Cys Cys Cys Ala Cys Cys Cys Ala Gly Gly Ala Gly Cys Cys Ala Gly
465 470 475 480
Cys Ala Cys Thr Gly Gly Gly Gly Ala Cys Cys Ala Cys Cys Thr Gly
485 490 495
Cys Thr Ala Cys Gly Cys Cys Thr Cys Ala Gly Gly Cys Thr Gly Gly
500 505 510
Gly Gly Cys Ala Gly Cys Ala Thr Thr Gly Ala Ala Cys Cys Ala Gly
515 520 525
Ala Gly Gly Ala Gly Thr Thr Cys Thr Thr Gly Ala Cys Cys Cys Cys
530 535 540
Ala Ala Ala Gly Ala Ala Ala Cys Thr Thr Cys Ala Gly Thr Gly Thr
545 550 555 560
Gly Thr Gly Gly Ala Cys Cys Thr Cys Cys Ala Thr Gly Thr Thr Ala
565 570 575
Thr Thr Thr Cys Cys Ala Ala Thr Gly Ala Cys Gly Thr Gly Thr Gly
580 585 590
Thr Gly Cys Gly Cys Ala Ala Gly Thr Thr Cys Ala Cys Cys Cys Thr
595 600 605
Cys Ala Gly Ala Ala Gly Gly Thr Gly Ala Cys Cys Ala Ala Gly Thr
610 615 620
Thr Cys Ala Thr Gly Cys Thr Gly Thr Gly Thr Gly Cys Thr Gly Gly
625 630 635 640
Ala Cys Gly Cys Thr Gly Gly Ala Cys Ala Gly Gly Gly Gly Gly Cys
645 650 655
Ala Ala Ala Ala Gly Cys Ala Cys Cys Thr Gly Cys Thr Cys Gly Thr
660 665 670
Gly Gly Gly Thr Cys Ala Thr Thr Cys Thr Gly Ala Thr Cys Ala Cys
675 680 685
Cys Gly Ala Ala Cys Thr Gly Ala Cys Cys Ala Thr Gly Cys Cys Ala
690 695 700
Gly Cys Cys Cys Thr Gly Cys Cys Gly Ala Thr Gly Gly Thr Cys Cys
705 710 715 720
Thr Cys Cys Ala Thr Gly Gly Cys Thr Cys Cys Cys Thr Ala Gly Thr
725 730 735
Gly Cys Cys Cys Thr Gly Gly Ala Gly Ala Gly Gly Ala Gly Gly Thr
740 745 750
Gly Thr Cys Thr Ala Gly Thr Cys Ala Gly Ala Gly Ala Gly Thr Ala
755 760 765
Gly Thr Cys Cys Thr Gly Gly Ala Ala Gly Gly Thr Gly Gly Cys Cys
770 775 780
Thr Cys Thr Gly Thr Gly Ala Gly Gly Ala Gly Cys Cys Ala Cys Gly
785 790 795 800
Gly Gly Gly Ala Cys Ala Gly Cys Ala Thr Cys Cys Thr Gly Cys Ala
805 810 815
Gly Ala Thr Gly Gly Thr Cys Cys Thr Gly Gly Cys Cys Cys Thr Thr
820 825 830
Gly Thr Cys Cys Cys Ala Cys Cys Gly Ala Cys Cys Thr Gly Thr Cys
835 840 845
Thr Ala Cys Ala Ala Gly Gly Ala Cys Thr Gly Thr Cys Cys Thr Cys
850 855 860
Gly Thr Gly Gly Ala Cys Cys Cys Thr Cys Cys Cys Cys Thr Cys Thr
865 870 875 880
Gly Cys Ala Cys Ala Gly Gly Ala Gly Cys Thr Gly Gly Ala Cys Cys
885 890 895
Cys Thr Gly Ala Ala Gly Thr Cys Cys Cys Thr Thr Cys Cys Cys Cys
900 905 910
Ala Cys Cys Gly Gly Cys Cys Ala Gly Gly Ala Cys Thr Gly Gly Ala
915 920 925
Gly Cys Cys Cys Cys Thr Ala Cys Cys Cys Cys Thr Cys Thr Gly Thr
930 935 940
Thr Gly Gly Ala Ala Thr Cys Cys Cys Thr Gly Cys Cys Cys Ala Cys
945 950 955 960
Cys Thr Thr Cys Thr Thr Cys Thr Gly Gly Ala Ala Gly Thr Cys Gly
965 970 975
Gly Cys Thr Cys Thr Gly Gly Ala Gly Ala Cys Ala Thr Thr Thr Cys
980 985 990
Thr Cys Thr Cys Thr Thr Cys Thr Thr Cys Cys Ala Ala Ala Gly Cys
995 1000 1005
Thr Gly Gly Gly Ala Ala Cys Thr Gly Cys Thr Ala Thr Cys Thr
1010 1015 1020
Gly Thr Thr Ala Thr Cys Thr Gly Cys Cys Thr Gly Thr Cys Cys
1025 1030 1035
Ala Gly Gly Thr Cys Thr Gly Ala Ala Ala Gly Ala Thr Ala Gly
1040 1045 1050
Gly Ala Thr Thr Gly Cys Cys Cys Ala Gly Gly Cys Ala Gly Ala
1055 1060 1065
Ala Ala Cys Thr Gly Gly Gly Ala Cys Thr Gly Ala Cys Cys Thr
1070 1075 1080
Ala Thr Cys Thr Cys Ala Cys Thr Cys Thr Cys Thr Cys Cys Cys
1085 1090 1095
Thr Gly Cys Thr Thr Thr Thr Ala Cys Cys Cys Thr Thr Ala Gly
1100 1105 1110
Gly Gly Thr Gly Ala Thr Thr Cys Thr Gly Gly Gly Gly Gly Cys
1115 1120 1125
Cys Cys Ala Cys Thr Thr Gly Thr Cys Thr Gly Thr Ala Ala Thr
1130 1135 1140
Gly Gly Thr Gly Thr Gly Cys Thr Thr Cys Ala Ala Gly Gly Thr
1145 1150 1155
Ala Thr Cys Ala Cys Gly Thr Cys Ala Thr Gly Gly Gly Gly Cys
1160 1165 1170
Ala Gly Thr Gly Ala Ala Cys Cys Ala Thr Gly Thr Gly Cys Cys
1175 1180 1185
Cys Thr Gly Cys Cys Cys Gly Ala Ala Ala Gly Gly Cys Cys Thr
1190 1195 1200
Thr Cys Cys Cys Thr Gly Thr Ala Cys Ala Cys Cys Ala Ala Gly
1205 1210 1215
Gly Thr Gly Gly Thr Gly Cys Ala Thr Thr Ala Cys Cys Gly Gly
1220 1225 1230
Ala Ala Gly Thr Gly Gly Ala Thr Cys Ala Ala Gly Gly Ala Cys
1235 1240 1245
Ala Cys Cys Ala Thr Cys Gly Thr Gly Gly Cys Cys Ala Ala Cys
1250 1255 1260
Cys Cys Cys Thr Gly Ala Gly Cys Ala Cys Cys Cys Cys Thr Ala
1265 1270 1275
Thr Cys Ala Ala Cys Cys Cys Cys Cys Thr Ala Thr Thr Gly Thr
1280 1285 1290
Ala Gly Thr Ala Ala Ala Cys Thr Thr Gly Gly Ala Ala Cys Cys
1295 1300 1305
Thr Thr Gly Gly Ala Ala Ala Thr Gly Ala Cys Cys Ala Gly Gly
1310 1315 1320
Cys Cys Ala Ala Gly Ala Cys Thr Cys Ala Ala Gly Cys Cys Thr
1325 1330 1335
Cys Cys Cys Cys Ala Gly Thr Thr Cys Thr Ala Cys Thr Gly Ala
1340 1345 1350
Cys Cys Thr Thr Thr Gly Thr Cys Cys Thr Thr Ala Gly Gly Thr
1355 1360 1365
Gly Thr Gly Ala Gly Gly Thr Cys Cys Ala Gly Gly Gly Thr Thr
1370 1375 1380
Gly Cys Thr Ala Gly Gly Ala Ala Ala Ala Gly Ala Ala Ala Thr
1385 1390 1395
Cys Ala Gly Cys Ala Gly Ala Cys Ala Cys Ala Gly Gly Thr Gly
1400 1405 1410
Thr Ala Gly Ala Cys Cys Ala Gly Ala Gly Thr Gly Thr Thr Thr
1415 1420 1425
Cys Thr Thr Ala Ala Ala Thr Gly Gly Thr Gly Thr Ala Ala Thr
1430 1435 1440
Thr Thr Thr Gly Thr Cys Cys Thr Cys Thr Cys Thr Gly Thr Gly
1445 1450 1455
Thr Cys Cys Thr Gly Gly Gly Gly Ala Ala Thr Ala Cys Thr Gly
1460 1465 1470
Gly Cys Cys Ala Thr Gly Cys Cys Thr Gly Gly Ala Gly Ala Cys
1475 1480 1485
Ala Thr Ala Thr Cys Ala Cys Thr Cys Ala Ala Thr Thr Thr Cys
1490 1495 1500
Thr Cys Thr Gly Ala Gly Gly Ala Cys Ala Cys Ala Gly Ala Thr
1505 1510 1515
Ala Gly Gly Ala Thr Gly Gly Gly Gly Thr Gly Thr Cys Thr Gly
1520 1525 1530
Thr Gly Thr Thr Ala Thr Thr Thr Gly Thr Gly Gly Gly Gly Thr
1535 1540 1545
Ala Cys Ala Gly Ala Gly Ala Thr Gly Ala Ala Ala Gly Ala Gly
1550 1555 1560
Gly Gly Gly Thr Gly Gly Gly Ala Thr Cys Cys Ala Cys Ala Cys
1565 1570 1575
Thr Gly Ala Gly Ala Gly Ala Gly Thr Gly Gly Ala Gly Ala Gly
1580 1585 1590
Thr Gly Ala Cys Ala Thr Gly Thr Gly Cys Thr Gly Gly Ala Cys
1595 1600 1605
Ala Cys Thr Gly Thr Cys Cys Ala Thr Gly Ala Ala Gly Cys Ala
1610 1615 1620
Cys Thr Gly Ala Gly Cys Ala Gly Ala Ala Gly Cys Thr Gly Gly
1625 1630 1635
Ala Gly Gly Cys Ala Cys Ala Ala Cys Gly Cys Ala Cys Cys Ala
1640 1645 1650
Gly Ala Cys Ala Cys Thr Cys Ala Cys Ala Gly Cys Ala Ala Gly
1655 1660 1665
Gly Ala Thr Gly Gly Ala Gly Cys Thr Gly Ala Ala Ala Ala Cys
1670 1675 1680
Ala Thr Ala Ala Cys Cys Cys Ala Cys Thr Cys Thr Gly Thr Cys
1685 1690 1695
Cys Thr Gly Gly Ala Gly Gly Cys Ala Cys Thr Gly Gly Gly Ala
1700 1705 1710
Ala Gly Cys Cys Thr Ala Gly Ala Gly Ala Ala Gly Gly Cys Thr
1715 1720 1725
Gly Thr Gly Ala Gly Cys Cys Ala Ala Gly Gly Ala Gly Gly Gly
1730 1735 1740
Ala Gly Gly Gly Thr Cys Thr Thr Cys Cys Thr Thr Thr Gly Gly
1745 1750 1755
Cys Ala Thr Gly Gly Gly Ala Thr Gly Gly Gly Gly Ala Thr Gly
1760 1765 1770
Ala Ala Gly Thr Ala Ala Gly Gly Ala Gly Ala Gly Gly Gly Ala
1775 1780 1785
Cys Thr Gly Gly Ala Cys Cys Cys Cys Cys Thr Gly Gly Ala Ala
1790 1795 1800
Gly Cys Thr Gly Ala Thr Thr Cys Ala Cys Thr Ala Thr Gly Gly
1805 1810 1815
Gly Gly Gly Gly Ala Gly Gly Thr Gly Thr Ala Thr Thr Gly Ala
1820 1825 1830
Ala Gly Thr Cys Cys Thr Cys Cys Ala Gly Ala Cys Ala Ala Cys
1835 1840 1845
Cys Cys Thr Cys Ala Gly Ala Thr Thr Thr Gly Ala Thr Gly Ala
1850 1855 1860
Thr Thr Thr Cys Cys Thr Ala Gly Thr Ala Gly Ala Ala Cys Thr
1865 1870 1875
Cys Ala Cys Ala Gly Ala Ala Ala Thr Ala Ala Ala Gly Ala Gly
1880 1885 1890
Cys Thr Gly Thr Thr Ala Thr Ala Cys Thr Gly Thr Gly
1895 1900 1905
<210> 21
<211> 69
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 21
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Lys
65
<210> 22
<211> 554
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 22
agccccaagc ttaccacctg cacccggaga gctgtgtcac catgtgggtc ccggttgtct 60
tcctcaccct tccgtgacgt ggattggtgc tgcacccctc atcctgtctc ggattgtggg 120
aggctgggag tgcgagaagc attcccaacc ctggcaggtg cttgtggcct ctcgtggcag 180
ggcagtctgc ggcggtgttc tggtgcaccc ccagtgggtc ctcacagctg cccactgcat 240
caggaagtga gtaggggcct ggggtctggg gagcaggtgt ctgtgtccca gaggaataac 300
agctgggcat tttccccagg ataacctcta aggccagcct tgggactggg ggagagaggg 360
aaagttctgg ttcaggtcac atggggaggc agggttgggg ctggaccacc ctccccatgg 420
ctgcctgggt ctccatctgt gttcctctat gtctctttgt gtcgctttca ttatgtctct 480
tggtaactgg cttcggttgt gtctctccgt gtgactattt tgttctctct ctccctctct 540
tctctgtctt cagt 554
<210> 23
<211> 220
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein that is the source of the KLK3 peptide
<400> 23
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro Lys
115 120 125
Lys Leu Gln Cys Val Asp Leu His Val Ile Ser Asn Asp Val Cys Ala
130 135 140
Gln Val His Pro Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly Arg
145 150 155 160
Trp Thr Gly Gly Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro Leu
165 170 175
Val Cys Asn Gly Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu Pro
180 185 190
Cys Ala Leu Pro Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His Tyr
195 200 205
Arg Lys Trp Ile Lys Asp Thr Ile Val Ala Asn Pro
210 215 220
<210> 24
<211> 1341
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 24
agccccaagc ttaccacctg cacccggaga gctgtgtcac catgtgggtc ccggttgtct 60
tcctcaccct gtccgtgacg tggattggtg ctgcacccct catcctgtct cggattgtgg 120
gaggctggga gtgcgagaag cattcccaac cctggcaggt gcttgtggcc tctcgtggca 180
gggcagtctg cggcggtgtt ctggtgcacc cccagtgggt cctcacagct gcccactgca 240
tcaggaacaa aagcgtgatc ttgctgggtc ggcacagcct gtttcatcct gaagacacag 300
gccaggtatt tcaggtcagc cacagcttcc cacacccgct ctacgatatg agcctcctga 360
agaatcgatt cctcaggcca ggtgatgact ccagcattga accagaggag ttcttgaccc 420
caaagaaact tcagtgtgtg gacctccatg ttatttccaa tgacgtgtgt gcgcaagttc 480
accctcagaa ggtgaccaag ttcatgctgt gtgctggacg ctggacaggg ggcaaaagca 540
cctgctcggg tgattctggg ggcccacttg tctgtaatgg tgtgcttcaa ggtatcacgt 600
catggggcag tgaaccatgt gccctgcccg aaaggccttc cctgtacacc aaggtggtgc 660
attaccggaa gtggatcaag gacaccatcg tggccaaccc ctgagcaccc ctatcaaccc 720
cctattgtag taaacttgga accttggaaa tgaccaggcc aagactcaag cctccccagt 780
tctactgacc tttgtcctta ggtgtgaggt ccagggttgc taggaaaaga aatcagcaga 840
cacaggtgta gaccagagtg tttcttaaat ggtgtaattt tgtcctctct gtgtcctggg 900
gaatactggc catgcctgga gacatatcac tcaatttctc tgaggacaca gataggatgg 960
ggtgtctgtg ttatttgtgg ggtacagaga tgaaagaggg gtgggatcca cactgagaga 1020
gtggagagtg acatgtgctg gacactgtcc atgaagcact gagcagaagc tggaggcaca 1080
acgcaccaga cactcacagc aaggatggag ctgaaaacat aacccactct gtcctggagg 1140
cactgggaag cctagagaag gctgtgagcc aaggagggag ggtcttcctt tggcatggga 1200
tggggatgaa gtaaggagag ggactggacc ccctggaagc tgattcacta tggggggagg 1260
tgtattgaag tcctccagac aaccctcaga tttgatgatt tcctagtaga actcacagaa 1320
ataaagagct gttatactgt g 1341
<210> 25
<211> 218
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 25
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Lys Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu
65 70 75 80
Leu Arg Leu Ser Glu Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met
85 90 95
Asp Leu Pro Thr Gln Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser
100 105 110
Gly Trp Gly Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu
115 120 125
Gln Cys Val Asp Leu His Val Ile Ser Asn Asp Val Cys Ala Gln Val
130 135 140
His Pro Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr
145 150 155 160
Gly Gly Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro Leu Val Cys
165 170 175
Asn Gly Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu Pro Cys Ala
180 185 190
Leu Pro Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His Tyr Arg Lys
195 200 205
Trp Ile Lys Asp Thr Ile Val Ala Asn Pro
210 215
<210> 26
<211> 1325
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 26
agccccaagc ttaccacctg cacccggaga gctgtgtcac catgtgggtc ccggttgtct 60
tcctcaccct gtccgtgacg tggattggtg ctgcacccct catcctgtct cggattgtgg 120
gaggctggga gtgcgagaag cattcccaac cctggcaggt gcttgtggcc tctcgtggca 180
gggcagtctg cggcggtgtt ctggtgcacc cccagtgggt cctcacagct gcccactgca 240
tcaggaagcc aggtgatgac tccagccacg acctcatgct gctccgcctg tcagagcctg 300
ccgagctcac ggatgctgtg aaggtcatgg acctgcccac ccaggagcca gcactgggga 360
ccacctgcta cgcctcaggc tggggcagca ttgaaccaga ggagttcttg accccaaaga 420
aacttcagtg tgtggacctc catgttattt ccaatgacgt gtgtgcgcaa gttcaccctc 480
agaaggtgac caagttcatg ctgtgtgctg gacgctggac agggggcaaa agcacctgct 540
cgggtgattc tgggggccca cttgtctgta atggtgtgct tcaaggtatc acgtcatggg 600
gcagtgaacc atgtgccctg cccgaaaggc cttccctgta caccaaggtg gtgcattacc 660
caaggacacc atcgtggcca acccctgagc acccctatca accccctatt gtagtaaact 720
tggaaccttg gaaatgacca ggccaagact caagcctccc cagttctact gacctttgtc 780
cttaggtgtg aggtccaggg ttgctaggaa aagaaatcag cagacacagg tgtagaccag 840
agtgtttctt aaatggtgta attttgtcct ctctgtgtcc tggggaatac tggccatgcc 900
tggagacata tcactcaatt tctctgagga cacagatagg atggggtgtc tgtgttattt 960
gtggggtaca gagatgaaag aggggtggga tccacactga gagagtggag agtgacatgt 1020
gctggacact gtccatgaag cactgagcag aagctggagg cacaacgcac cagacactca 1080
cagcaaggat ggagctgaaa acataaccca ctctgtcctg gaggcactgg gaagcctaga 1140
gaaggctgtg agccaaggag ggagggtctt cctttggcat gggatgggga tgaagtaagg 1200
agagggactg gaccccctgg aagctgattc actatggggg gaggtgtatt gaagtcctcc 1260
agacaaccct cagatttgat gatttcctag tagaactcac agaaataaag agctgttata 1320
ctgtg 1325
<210> 27
<211> 261
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 27
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu Leu Arg Leu Ser Glu
115 120 125
Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met Asp Leu Pro Thr Gln
130 135 140
Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser Gly Trp Gly Ser Ile
145 150 155 160
Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu Gln Cys Val Asp Leu
165 170 175
His Val Ile Ser Asn Asp Val Cys Ala Gln Val His Pro Gln Lys Val
180 185 190
Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr Gly Gly Lys Ser Thr
195 200 205
Cys Ser Gly Asp Ser Gly Gly Pro Leu Val Cys Asn Gly Val Leu Gln
210 215 220
Gly Ile Thr Ser Trp Gly Ser Glu Pro Cys Ala Leu Pro Glu Arg Pro
225 230 235 240
Ser Leu Tyr Thr Lys Val Val His Tyr Arg Lys Trp Ile Lys Asp Thr
245 250 255
Ile Val Ala Asn Pro
260
<210> 28
<211> 1464
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 28
agccccaagc ttaccacctg cacccggaga gctgtgtcac catgtgggtc ccggttgtct 60
tcctcaccct gtccgtgacg tggattggtg ctgcacccct catcctgtct cggattgtgg 120
gaggctggga gtgcgagaag cattcccaac cctggcaggt gcttgtggcc tctcgtggca 180
gggcagtctg cggcggtgtt ctggtgcacc cccagtgggt cctcacagct gcccactgca 240
tcaggaacaa aagcgtgatc ttgctgggtc ggcacagcct gtttcatcct gaagacacag 300
gccaggtatt tcaggtcagc cacagcttcc cacacccgct ctacgatatg agcctcctga 360
agaatcgatt cctcaggcca ggtgatgact ccagccacga cctcatgctg ctccgcctgt 420
cagagcctgc cgagctcacg gatgctgtga aggtcatgga cctgcccacc caggagccag 480
cactggggac cacctgctac gcctcaggct ggggcagcat tgaaccagag gagttcttga 540
ccccaaagaa acttcagtgt gtggacctcc atgttatttc caatgacgtg tgtgcgcaag 600
ttcaccctca gaaggtgacc aagttcatgc tgtgtgctgg acgctggaca gggggcaaaa 660
gcacctgctc gggtgattct gggggcccac ttgtctgtaa tggtgtgctt caaggtatca 720
cgtcatgggg cagtgaacca tgtgccctgc ccgaaaggcc ttccctgtac accaaggtgg 780
tgcattaccg gaagtggatc aaggacacca tcgtggccaa cccctgagca cccctatcaa 840
ccccctattg tagtaaactt ggaaccttgg aaatgaccag gccaagactc aagcctcccc 900
agttctactg acctttgtcc ttaggtgtga ggtccagggt tgctaggaaa agaaatcagc 960
agacacaggt gtagaccaga gtgtttctta aatggtgtaa ttttgtcctc tctgtgtcct 1020
ggggaatact ggccatgcct ggagacatat cactcaattt ctctgaggac acagatagga 1080
tggggtgtct gtgttatttg tggggtacag agatgaaaga ggggtgggat ccacactgag 1140
agagtggaga gtgacatgtg ctggacactg tccatgaagc actgagcaga agctggaggc 1200
acaacgcacc agacactcac agcaaggatg gagctgaaaa cataacccac tctgtcctgg 1260
aggcactggg aagcctagag aaggctgtga gccaaggagg gagggtcttc ctttggcatg 1320
ggatggggat gaagtaagga gagggactgg accccctgga agctgattca ctatgggggg 1380
aggtgtattg aagtcctcca gacaaccctc agatttgatg atttcctagt agaactcaca 1440
gaaataaaga gctgttatac tgtg 1464
<210> 29
<211> 261
<212> PRT
<213> Artificial Sequence
<220>
<223> the KLK3 protein
<400> 29
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu Leu Arg Leu Ser Glu
115 120 125
Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met Asp Leu Pro Thr Gln
130 135 140
Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser Gly Trp Gly Ser Ile
145 150 155 160
Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu Gln Cys Val Asp Leu
165 170 175
His Val Ile Ser Asn Asp Val Cys Ala Gln Val His Pro Gln Lys Val
180 185 190
Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr Gly Gly Lys Ser Thr
195 200 205
Cys Ser Gly Asp Ser Gly Gly Pro Leu Val Cys Asn Gly Val Leu Gln
210 215 220
Gly Ile Thr Ser Trp Gly Ser Glu Pro Cys Ala Leu Pro Glu Arg Pro
225 230 235 240
Ser Leu Tyr Thr Lys Val Val His Tyr Arg Lys Trp Ile Lys Asp Thr
245 250 255
Ile Val Ala Asn Pro
260
<210> 30
<211> 1495
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 30
gggggagccc caagcttacc acctgcaccc ggagagctgt gtcaccatgt gggtcccggt 60
tgtcttcctc accctgtccg tgacgtggat tggtgctgca cccctcatcc tgtctcggat 120
tgtgggaggc tgggagtgcg agaagcattc ccaaccctgg caggtgcttg tggcctctcg 180
tggcagggca gtctgcggcg gtgttctggt gcacccccag tgggtcctca cagctgccca 240
ctgcatcagg aacaaaagcg tgatcttgct gggtcggcac agcctgtttc atcctgaaga 300
cacaggccag gtatttcagg tcagccacag cttcccacac ccgctctacg atatgagcct 360
cctgaagaat cgattcctca ggccaggtga tgactccagc cacgacctca tgctgctccg 420
cctgtcagag cctgccgagc tcacggatgc tgtgaaggtc atggacctgc ccacccagga 480
gccagcactg gggaccacct gctacgcctc aggctggggc agcattgaac cagaggagtt 540
cttgacccca aagaaacttc agtgtgtgga cctccatgtt atttccaatg acgtgtgtgc 600
gcaagttcac cctcagaagg tgaccaagtt catgctgtgt gctggacgct ggacaggggg 660
caaaagcacc tgctcgggtg attctggggg cccacttgtc tgtaatggtg tgcttcaagg 720
tatcacgtca tggggcagtg aaccatgtgc cctgcccgaa aggccttccc tgtacaccaa 780
ggtggtgcat taccggaagt ggatcaagga caccatcgtg gccaacccct gagcacccct 840
atcaactccc tattgtagta aacttggaac cttggaaatg accaggccaa gactcaggcc 900
tccccagttc tactgacctt tgtccttagg tgtgaggtcc agggttgcta ggaaaagaaa 960
tcagcagaca caggtgtaga ccagagtgtt tcttaaatgg tgtaattttg tcctctctgt 1020
gtcctgggga atactggcca tgcctggaga catatcactc aatttctctg aggacacaga 1080
taggatgggg tgtctgtgtt atttgtgggg tacagagatg aaagaggggt gggatccaca 1140
ctgagagagt ggagagtgac atgtgctgga cactgtccat gaagcactga gcagaagctg 1200
gaggcacaac gcaccagaca ctcacagcaa ggatggagct gaaaacataa cccactctgt 1260
cctggaggca ctgggaagcc tagagaaggc tgtgagccaa ggagggaggg tcttcctttg 1320
gcatgggatg gggatgaagt agggagaggg actggacccc ctggaagctg attcactatg 1380
gggggaggtg tattgaagtc ctccagacaa ccctcagatt tgatgatttc ctagtagaac 1440
tcacagaaat aaagagctgt tatactgcga aaaaaaaaaa aaaaaaaaaa aaaaa 1495
<210> 31
<211> 218
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 31
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro Lys
115 120 125
Lys Leu Gln Cys Val Asp Leu His Val Ile Ser Asn Asp Val Cys Ala
130 135 140
Gln Val His Pro Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly Arg
145 150 155 160
Trp Thr Gly Gly Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro Leu
165 170 175
Val Cys Asn Gly Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu Pro
180 185 190
Cys Ala Leu Pro Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His Tyr
195 200 205
Arg Lys Trp Ile Lys Asp Thr Ile Val Ala
210 215
<210> 32
<211> 227
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 32
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu Leu Arg Leu Ser Glu
115 120 125
Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met Asp Leu Pro Thr Gln
130 135 140
Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser Gly Trp Gly Ser Ile
145 150 155 160
Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu Gln Cys Val Asp Leu
165 170 175
His Val Ile Ser Asn Asp Val Cys Ala Gln Val His Pro Gln Lys Val
180 185 190
Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr Gly Gly Lys Ser Thr
195 200 205
Cys Ser Val Ser His Pro Tyr Ser Gln Asp Leu Glu Gly Lys Gly Glu
210 215 220
Trp Gly Pro
225
<210> 33
<211> 104
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 33
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Glu Arg Gly His Gly Trp Gly Asp Ala Gly Glu Gly Ala Ser Pro Asp
20 25 30
Cys Gln Ala Glu Ala Leu Ser Pro Pro Thr Gln His Pro Ser Pro Asp
35 40 45
Arg Glu Leu Gly Ser Phe Leu Ser Leu Pro Ala Pro Leu Gln Ala His
50 55 60
Thr Pro Ser Pro Ser Ile Leu Gln Gln Ser Ser Leu Pro His Gln Val
65 70 75 80
Pro Ala Pro Ser His Leu Pro Gln Asn Phe Leu Pro Ile Ala Gln Pro
85 90 95
Ala Pro Cys Ser Gln Leu Leu Tyr
100
<210> 34
<211> 261
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 34
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu Leu Arg Leu Ser Glu
115 120 125
Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met Asp Leu Pro Thr Gln
130 135 140
Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser Gly Trp Gly Ser Ile
145 150 155 160
Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu Gln Cys Val Asp Leu
165 170 175
His Val Ile Ser Asn Asp Val Cys Ala Gln Val His Pro Gln Lys Val
180 185 190
Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr Gly Gly Lys Ser Thr
195 200 205
Cys Ser Gly Asp Ser Gly Gly Pro Leu Val Cys Asn Gly Val Leu Gln
210 215 220
Gly Ile Thr Ser Trp Gly Ser Glu Pro Cys Ala Leu Pro Glu Arg Pro
225 230 235 240
Ser Leu Tyr Thr Lys Val Val His Tyr Arg Lys Trp Ile Lys Asp Thr
245 250 255
Ile Val Ala Asn Pro
260
<210> 35
<211> 1729
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding the KLK3 protein
<400> 35
aagtttccct tctcccagtc caagacccca aatcaccaca aaggacccaa tccccagact 60
caagatatgg tctgggcgct gtcttgtgtc tcctaccctg atccctgggt tcaactctgc 120
tcccagagca tgaagcctct ccaccagcac cagccaccaa cctgcaaacc tagggaagat 180
tgacagaatt cccagccttt cccagctccc cctgcccatg tcccaggact cccagccttg 240
gttctctgcc cccgtgtctt ttcaaaccca catcctaaat ccatctccta tccgagtccc 300
ccagttcctc ctgtcaaccc tgattcccct gatctagcac cccctctgca ggtgctgcac 360
ccctcatcct gtctcggatt gtgggaggct gggagtgcga gaagcattcc caaccctggc 420
aggtgcttgt agcctctcgt ggcagggcag tctgcggcgg tgttctggtg cacccccagt 480
gggtcctcac agctacccac tgcatcagga acaaaagcgt gatcttgctg ggtcggcaca 540
gcctgtttca tcctgaagac acaggccagg tatttcaggt cagccacagc ttcccacacc 600
cgctctacga tatgagcctc ctgaagaatc gattcctcag gccaggtgat gactccagcc 660
acgacctcat gctgctccgc ctgtcagagc ctgccgagct cacggatgct atgaaggtca 720
tggacctgcc cacccaggag ccagcactgg ggaccacctg ctacgcctca ggctggggca 780
gcattgaacc agaggagttc ttgaccccaa agaaacttca gtgtgtggac ctccatgtta 840
tttccaatga cgtgtgtgcg caagttcacc ctcagaaggt gaccaagttc atgctgtgtg 900
ctggacgctg gacagggggc aaaagcacct gctcgggtga ttctgggggc ccacttgtct 960
gtaatggtgt gcttcaaggt atcacgtcat ggggcagtga accatgtgcc ctgcccgaaa 1020
ggccttccct gtacaccaag gtggtgcatt accggaagtg gatcaaggac accatcgtgg 1080
ccaacccctg agcaccccta tcaactccct attgtagtaa acttggaacc ttggaaatga 1140
ccaggccaag actcaggcct ccccagttct actgaccttt gtccttaggt gtgaggtcca 1200
gggttgctag gaaaagaaat cagcagacac aggtgtagac cagagtgttt cttaaatggt 1260
gtaattttgt cctctctgtg tcctggggaa tactggccat gcctggagac atatcactca 1320
atttctctga ggacacagat aggatggggt gtctgtgtta tttgtggggt acagagatga 1380
aagaggggtg ggatccacac tgagagagtg gagagtgaca tgtgctggac actgtccatg 1440
aagcactgag cagaagctgg aggcacaacg caccagacac tcacagcaag gatggagctg 1500
aaaacataac ccactctgtc ctggaggcac tgggaagcct agagaaggct gtgaaccaag 1560
gagggagggt cttcctttgg catgggatgg ggatgaagta aggagaggga ctgaccccct 1620
ggaagctgat tcactatggg gggaggtgta ttgaagtcct ccagacaacc ctcagatttg 1680
atgatttcct agtagaactc acagaaataa agagctgtta tactgtgaa 1729
<210> 36
<211> 69
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 36
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Lys
65
<210> 37
<211> 220
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein that is the source of the KLK3 peptide
<400> 37
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg His Ser Leu
65 70 75 80
Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser His Ser Phe
85 90 95
Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg Phe Leu Arg
100 105 110
Pro Gly Asp Asp Ser Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro Lys
115 120 125
Lys Leu Gln Cys Val Asp Leu His Val Ile Ser Asn Asp Val Cys Ala
130 135 140
Gln Val His Pro Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly Arg
145 150 155 160
Trp Thr Gly Gly Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro Leu
165 170 175
Val Cys Asn Gly Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu Pro
180 185 190
Cys Ala Leu Pro Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His Tyr
195 200 205
Arg Lys Trp Ile Lys Asp Thr Ile Val Ala Asn Pro
210 215 220
<210> 38
<211> 218
<212> PRT
<213> Artificial Sequence
<220>
<223> KLK3 protein
<400> 38
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg Ile Val Gly Gly Trp Glu Cys Glu
20 25 30
Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg Gly Arg Ala
35 40 45
Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu Thr Ala Ala
50 55 60
His Cys Ile Arg Lys Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu
65 70 75 80
Leu Arg Leu Ser Glu Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met
85 90 95
Asp Leu Pro Thr Gln Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser
100 105 110
Gly Trp Gly Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu
115 120 125
Gln Cys Val Asp Leu His Val Ile Ser Asn Asp Val Cys Ala Gln Val
130 135 140
His Pro Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr
145 150 155 160
Gly Gly Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro Leu Val Cys
165 170 175
Asn Gly Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu Pro Cys Ala
180 185 190
Leu Pro Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His Tyr Arg Lys
195 200 205
Trp Ile Lys Asp Thr Ile Val Ala Asn Pro
210 215
<210> 39
<211> 24
<212> PRT
<213> Artificial Sequence
<220>
<223> The sequence lacking in KLK3 protein
<400> 39
Met Trp Val Pro Val Val Phe Leu Thr Leu Ser Val Thr Trp Ile Gly
1 5 10 15
Ala Ala Pro Leu Ile Leu Ser Arg
20
<210> 40
<211> 98
<212> PRT
<213> Artificial Sequence
<220>
<223> E7 protein
<400> 40
Met His Gly Asp Thr Pro Thr Leu His Glu Tyr Met Leu Asp Leu Gln
1 5 10 15
Pro Glu Thr Thr Asp Leu Tyr Cys Tyr Glu Gln Leu Asn Asp Ser Ser
20 25 30
Glu Glu Glu Asp Glu Ile Asp Gly Pro Ala Gly Gln Ala Glu Pro Asp
35 40 45
Arg Ala His Tyr Asn Ile Val Thr Phe Cys Cys Lys Cys Asp Ser Thr
50 55 60
Leu Arg Leu Cys Val Gln Ser Thr His Val Asp Ile Arg Thr Leu Glu
65 70 75 80
Asp Leu Leu Met Gly Thr Leu Gly Ile Val Cys Pro Ile Cys Ser Gln
85 90 95
Lys Pro
<210> 41
<211> 105
<212> PRT
<213> Artificial Sequence
<220>
<223> E7 protein
<400> 41
Met His Gly Pro Lys Ala Thr Leu Gln Asp Ile Val Leu His Leu Glu
1 5 10 15
Pro Gln Asn Glu Ile Pro Val Asp Leu Leu Cys His Glu Gln Leu Ser
20 25 30
Asp Ser Glu Glu Glu Asn Asp Glu Ile Asp Gly Val Asn His Gln His
35 40 45
Leu Pro Ala Arg Arg Ala Glu Pro Gln Arg His Thr Met Leu Cys Met
50 55 60
Cys Cys Lys Cys Glu Ala Arg Ile Glu Leu Val Val Glu Ser Ser Ala
65 70 75 80
Asp Asp Leu Arg Ala Phe Gln Gln Leu Phe Leu Asn Thr Leu Ser Phe
85 90 95
Val Cys Pro Trp Cys Ala Ser Gln Gln
100 105
<210> 42
<211> 22
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 42
ggctcgagca tggagataca cc 22
<210> 43
<211> 28
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 43
ggggactagt ttatggtttc tgagaaca 28
<210> 44
<211> 31
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 44
gggggctagc cctcctttga ttagtatatt c 31
<210> 45
<211> 28
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 45
ctccctcgag atcataattt acttcatc 28
<210> 46
<211> 55
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 46
gactacaagg acgatgaccg acaagtgata acccgggatc taaataaatc cgttt 55
<210> 47
<211> 27
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 47
cccgtcgacc agctcttctt ggtgaag 27
<210> 48
<211> 25
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 48
gcggatccca tggagataca cctac 25
<210> 49
<211> 22
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 49
gctctagatt atggtttctg ag 22
<210> 50
<211> 31
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 50
ggggtctaga cctcctttga ttagtatatt c 31
<210> 51
<211> 45
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 51
atcttcgcta tctgtcgccg cggcgcgtgc ttcagtttgt tgcgc 45
<210> 52
<211> 45
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 52
gcgcaacaaa ctgaagcagc ggccgcggcg acagatagcg aagat 45
<210> 53
<211> 42
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 53
tgtaggtgta tctccatgct cgagagctag gcgatcaatt tc 42
<210> 54
<211> 42
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 54
ggaattgatc gcctagctct cgagcatgga gatacaccta ca 42
<210> 55
<211> 42
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 55
aaacggattt atttagatcc cgggttatgg tttctgagaa ca 42
<210> 56
<211> 42
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 56
tgttctcaga aaccataacc cgggatctaa ataaatccgt tt 42
<210> 57
<211> 28
<212> DNA
<213> Artificial Sequence
<220>
<223> primer
<400> 57
gggggtcgac cagctcttct tggtgaag 28
<210> 58
<211> 9
<212> PRT
<213> Artificial Sequence
<220>
<223> phycoerythrin (PE)-conjugated E7 peptide
<400> 58
Arg Ala His Tyr Asn Ile Val Thr Phe
1 5
<210> 59
<211> 6523
<212> DNA
<213> Artificial Sequence
<220>
<223> the plasmid pAdv142
<400> 59
cggagtgtat actggcttac tatgttggca ctgatgaggg tgtcagtgaa gtgcttcatg 60
tggcaggaga aaaaaggctg caccggtgcg tcagcagaat atgtgataca ggatatattc 120
cgcttcctcg ctcactgact cgctacgctc ggtcgttcga ctgcggcgag cggaaatggc 180
ttacgaacgg ggcggagatt tcctggaaga tgccaggaag atacttaaca gggaagtgag 240
agggccgcgg caaagccgtt tttccatagg ctccgccccc ctgacaagca tcacgaaatc 300
tgacgctcaa atcagtggtg gcgaaacccg acaggactat aaagatacca ggcgtttccc 360
cctggcggct ccctcgtgcg ctctcctgtt cctgcctttc ggtttaccgg tgtcattccg 420
ctgttatggc cgcgtttgtc tcattccacg cctgacactc agttccgggt aggcagttcg 480
ctccaagctg gactgtatgc acgaaccccc cgttcagtcc gaccgctgcg ccttatccgg 540
taactatcgt cttgagtcca acccggaaag acatgcaaaa gcaccactgg cagcagccac 600
tggtaattga tttagaggag ttagtcttga agtcatgcgc cggttaaggc taaactgaaa 660
ggacaagttt tggtgactgc gctcctccaa gccagttacc tcggttcaaa gagttggtag 720
ctcagagaac cttcgaaaaa ccgccctgca aggcggtttt ttcgttttca gagcaagaga 780
ttacgcgcag accaaaacga tctcaagaag atcatcttat taatcagata aaatatttct 840
agccctcctt tgattagtat attcctatct taaagttact tttatgtgga ggcattaaca 900
tttgttaatg acgtcaaaag gatagcaaga ctagaataaa gctataaagc aagcatataa 960
tattgcgttt catctttaga agcgaatttc gccaatatta taattatcaa aagagagggg 1020
tggcaaacgg tatttggcat tattaggtta aaaaatgtag aaggagagtg aaacccatga 1080
aaaaaataat gctagttttt attacactta tattagttag tctaccaatt gcgcaacaaa 1140
ctgaagcaaa ggatgcatct gcattcaata aagaaaattc aatttcatcc atggcaccac 1200
cagcatctcc gcctgcaagt cctaagacgc caatcgaaaa gaaacacgcg gatgaaatcg 1260
ataagtatat acaaggattg gattacaata aaaacaatgt attagtatac cacggagatg 1320
cagtgacaaa tgtgccgcca agaaaaggtt acaaagatgg aaatgaatat attgttgtgg 1380
agaaaaagaa gaaatccatc aatcaaaata atgcagacat tcaagttgtg aatgcaattt 1440
cgagcctaac ctatccaggt gctctcgtaa aagcgaattc ggaattagta gaaaatcaac 1500
cagatgttct ccctgtaaaa cgtgattcat taacactcag cattgatttg ccaggtatga 1560
ctaatcaaga caataaaata gttgtaaaaa atgccactaa atcaaacgtt aacaacgcag 1620
taaatacatt agtggaaaga tggaatgaaa aatatgctca agcttatcca aatgtaagtg 1680
caaaaattga ttatgatgac gaaatggctt acagtgaatc acaattaatt gcgaaatttg 1740
gtacagcatt taaagctgta aataatagct tgaatgtaaa cttcggcgca atcagtgaag 1800
ggaaaatgca agaagaagtc attagtttta aacaaattta ctataacgtg aatgttaatg 1860
aacctacaag accttccaga tttttcggca aagctgttac taaagagcag ttgcaagcgc 1920
ttggagtgaa tgcagaaaat cctcctgcat atatctcaag tgtggcgtat ggccgtcaag 1980
tttatttgaa attatcaact aattcccata gtactaaagt aaaagctgct tttgatgctg 2040
ccgtaagcgg aaaatctgtc tcaggtgatg tagaactaac aaatatcatc aaaaattctt 2100
ccttcaaagc cgtaatttac ggaggttccg caaaagatga agttcaaatc atcgacggca 2160
acctcggaga cttacgcgat attttgaaaa aaggcgctac ttttaatcga gaaacaccag 2220
gagttcccat tgcttataca acaaacttcc taaaagacaa tgaattagct gttattaaaa 2280
acaactcaga atatattgaa acaacttcaa aagcttatac agatggaaaa attaacatcg 2340
atcactctgg aggatacgtt gctcaattca acatttcttg ggatgaagta aattatgatc 2400
tcgagattgt gggaggctgg gagtgcgaga agcattccca accctggcag gtgcttgtgg 2460
cctctcgtgg cagggcagtc tgcggcggtg ttctggtgca cccccagtgg gtcctcacag 2520
ctgcccactg catcaggaac aaaagcgtga tcttgctggg tcggcacagc ctgtttcatc 2580
ctgaagacac aggccaggta tttcaggtca gccacagctt cccacacccg ctctacgata 2640
tgagcctcct gaagaatcga ttcctcaggc caggtgatga ctccagccac gacctcatgc 2700
tgctccgcct gtcagagcct gccgagctca cggatgctgt gaaggtcatg gacctgccca 2760
cccaggagcc agcactgggg accacctgct acgcctcagg ctggggcagc attgaaccag 2820
aggagttctt gaccccaaag aaacttcagt gtgtggacct ccatgttatt tccaatgacg 2880
tgtgtgcgca agttcaccct cagaaggtga ccaagttcat gctgtgtgct ggacgctgga 2940
cagggggcaa aagcacctgc tcgggtgatt ctgggggccc acttgtctgt tatggtgtgc 3000
ttcaaggtat cacgtcatgg ggcagtgaac catgtgccct gcccgaaagg ccttccctgt 3060
acaccaaggt ggtgcattac cggaagtgga tcaaggacac catcgtggcc aacccctaac 3120
ccgggccact aactcaacgc tagtagtgga tttaatccca aatgagccaa cagaaccaga 3180
accagaaaca gaacaagtaa cattggagtt agaaatggaa gaagaaaaaa gcaatgattt 3240
cgtgtgaata atgcacgaaa tcattgctta tttttttaaa aagcgatata ctagatataa 3300
cgaaacaacg aactgaataa agaatacaaa aaaagagcca cgaccagtta aagcctgaga 3360
aactttaact gcgagcctta attgattacc accaatcaat taaagaagtc gagacccaaa 3420
atttggtaaa gtatttaatt actttattaa tcagatactt aaatatctgt aaacccatta 3480
tatcgggttt ttgaggggat ttcaagtctt taagaagata ccaggcaatc aattaagaaa 3540
aacttagttg attgcctttt ttgttgtgat tcaactttga tcgtagcttc taactaatta 3600
attttcgtaa gaaaggagaa cagctgaatg aatatccctt ttgttgtaga aactgtgctt 3660
catgacggct tgttaaagta caaatttaaa aatagtaaaa ttcgctcaat cactaccaag 3720
ccaggtaaaa gtaaaggggc tatttttgcg tatcgctcaa aaaaaagcat gattggcgga 3780
cgtggcgttg ttctgacttc cgaagaagcg attcacgaaa atcaagatac atttacgcat 3840
tggacaccaa acgtttatcg ttatggtacg tatgcagacg aaaaccgttc atacactaaa 3900
ggacattctg aaaacaattt aagacaaatc aataccttct ttattgattt tgatattcac 3960
acggaaaaag aaactatttc agcaagcgat attttaacaa cagctattga tttaggtttt 4020
atgcctacgt taattatcaa atctgataaa ggttatcaag catattttgt tttagaaacg 4080
ccagtctatg tgacttcaaa atcagaattt aaatctgtca aagcagccaa aataatctcg 4140
caaaatatcc gagaatattt tggaaagtct ttgccagttg atctaacgtg caatcatttt 4200
gggattgctc gtataccaag aacggacaat gtagaatttt ttgatcccaa ttaccgttat 4260
tctttcaaag aatggcaaga ttggtctttc aaacaaacag ataataaggg ctttactcgt 4320
tcaagtctaa cggttttaag cggtacagaa ggcaaaaaac aagtagatga accctggttt 4380
aatctcttat tgcacgaaac gaaattttca ggagaaaagg gtttagtagg gcgcaatagc 4440
gttatgttta ccctctcttt agcctacttt agttcaggct attcaatcga aacgtgcgaa 4500
tataatatgt ttgagtttaa taatcgatta gatcaaccct tagaagaaaa agaagtaatc 4560
aaaattgtta gaagtgccta ttcagaaaac tatcaagggg ctaataggga atacattacc 4620
attctttgca aagcttgggt atcaagtgat ttaaccagta aagatttatt tgtccgtcaa 4680
gggtggttta aattcaagaa aaaaagaagc gaacgtcaac gtgttcattt gtcagaatgg 4740
aaagaagatt taatggctta tattagcgaa aaaagcgatg tatacaagcc ttatttagcg 4800
acgaccaaaa aagagattag agaagtgcta ggcattcctg aacggacatt agataaattg 4860
ctgaaggtac tgaaggcgaa tcaggaaatt ttctttaaga ttaaaccagg aagaaatggt 4920
ggcattcaac ttgctagtgt taaatcattg ttgctatcga tcattaaatt aaaaaaagaa 4980
gaacgagaaa gctatataaa ggcgctgaca gcttcgttta atttagaacg tacatttatt 5040
caagaaactc taaacaaatt ggcagaacgc cccaaaacgg acccacaact cgatttgttt 5100
agctacgata caggctgaaa ataaaacccg cactatgcca ttacatttat atctatgata 5160
cgtgtttgtt tttctttgct ggctagctta attgcttata tttacctgca ataaaggatt 5220
tcttacttcc attatactcc cattttccaa aaacatacgg ggaacacggg aacttattgt 5280
acaggccacc tcatagttaa tggtttcgag ccttcctgca atctcatcca tggaaatata 5340
ttcatccccc tgccggccta ttaatgtgac ttttgtgccc ggcggatatt cctgatccag 5400
ctccaccata aattggtcca tgcaaattcg gccggcaatt ttcaggcgtt ttcccttcac 5460
aaggatgtcg gtccctttca attttcggag ccagccgtcc gcatagccta caggcaccgt 5520
cccgatccat gtgtcttttt ccgctgtgta ctcggctccg tagctgacgc tctcgccttt 5580
tctgatcagt ttgacatgtg acagtgtcga atgcagggta aatgccggac gcagctgaaa 5640
cggtatctcg tccgacatgt cagcagacgg gcgaaggcca tacatgccga tgccgaatct 5700
gactgcatta aaaaagcctt ttttcagccg gagtccagcg gcgctgttcg cgcagtggac 5760
cattagattc tttaacggca gcggagcaat cagctcttta aagcgctcaa actgcattaa 5820
gaaatagcct ctttcttttt catccgctgt cgcaaaatgg gtaaataccc ctttgcactt 5880
taaacgaggg ttgcggtcaa gaattgccat cacgttctga acttcttcct ctgtttttac 5940
accaagtctg ttcatccccg tatcgacctt cagatgaaaa tgaagagaac cttttttcgt 6000
gtggcgggct gcctcctgaa gccattcaac agaataacct gttaaggtca cgtcatactc 6060
agcagcgatt gccacatact ccgggggaac cgcgccaagc accaatatag gcgccttcaa 6120
tccctttttg cgcagtgaaa tcgcttcatc caaaatggcc acggccaagc atgaagcacc 6180
tgcgtcaaga gcagcctttg ctgtttctgc atcaccatgc ccgtaggcgt ttgctttcac 6240
aactgccatc aagtggacat gttcaccgat atgttttttc atattgctga cattttcctt 6300
tatcgcggac aagtcaattt ccgcccacgt atctctgtaa aaaggttttg tgctcatgga 6360
aaactcctct cttttttcag aaaatcccag tacgtaatta agtatttgag aattaatttt 6420
atattgatta atactaagtt tacccagttt tcacctaaaa aacaaatgat gagataatag 6480
ctccaaaggc taaagaggac tataccaact atttgttaat taa 6523
<210> 60
<211> 36
<212> DNA
<213> Artificial Sequence
<220>
<223> Adv271-actAF1
<400> 60
cggaattcgg atccgcgcca aatcattggt tgattg 36
<210> 61
<211> 37
<212> DNA
<213> Artificial Sequence
<220>
<223> Adv272-actAR1
<400> 61
gcgagtcgac gtcggggtta atcgtaatgc aattggc 37
<210> 62
<211> 35
<212> DNA
<213> Artificial Sequence
<220>
<223> Adv273-actAF2
<400> 62
gcgagtcgac ccatacgacg ttaattcttg caatg 35
<210> 63
<211> 39
<212> DNA
<213> Artificial Sequence
<220>
<223> Adv274-actAR2
<400> 63
gatactgcag ggatccttcc cttctcggta atcagtcac 39
<210> 64
<211> 19
<212> DNA
<213> Artificial Sequence
<220>
<223> primer 3
<400> 64
tgggatggcc aagaaattc 19
<210> 65
<211> 22
<212> DNA
<213> Artificial Sequence
<220>
<223> primer 4
<400> 65
ctaccatgtc ttccgttgct tg 22
<210> 66
<211> 28
<212> DNA
<213> Artificial Sequence
<220>
<223> Her-2-Chimera (F)
<400> 66
tgatctcgag acccacctgg acatgctc 28
<210> 67
<211> 49
<212> DNA
<213> Artificial Sequence
<220>
<223> HerEC1-EC2F (Junction)
<400> 67
ctaccaggac acgattttgt ggaagaatat ccaggagttt gctggctgc 49
<210> 68
<211> 49
<212> DNA
<213> Artificial Sequence
<220>
<223> HerEC1-EC2R (Junction)
<400> 68
gcagccagca aactcctgga tattcttcca caaaatcgtg tcctggtag 49
<210> 69
<211> 50
<212> DNA
<213> Artificial Sequence
<220>
<223> HerEC2-ICIF (Junction)
<400> 69
ctgccaccag ctgtgcgccc gagggcagca gaagatccgg aagtacacga 50
<210> 70
<211> 50
<212> DNA
<213> Artificial Sequence
<220>
<223> HerEC2-ICIR (Junction)
<400> 70
tcgtgtactt ccggatcttc tgctgccctc gggcgcacag ctggtggcag 50
<210> 71
<211> 39
<212> DNA
<213> Artificial Sequence
<220>
<223> Her-2-Chimera (R)
<400> 71
gtggcccggg tctagattag tctaagaggc agccatagg 39
<210> 72
<211> 28
<212> DNA
<213> Artificial Sequence
<220>
<223> Her-2-EC1(F)
<400> 72
ccgcctcgag gccgcgagca cccaagtg 28
<210> 73
<211> 31
<212> DNA
<213> Artificial Sequence
<220>
<223> Her-2-EC1(R)
<400> 73
cgcgactagt ttaatcctct gctgtcacct c 31
<210> 74
<211> 28
<212> DNA
<213> Artificial Sequence
<220>
<223> Her-2-EC2(F)
<400> 74
ccgcctcgag tacctttcta cggacgtg 28
<210> 75
<211> 30
<212> DNA
<213> Artificial Sequence
<220>
<223> Her- 2- EC2(R)
<400> 75
cgcgactagt ttactctggc cggttggcag 30
<210> 76
<211> 31
<212> DNA
<213> Artificial Sequence
<220>
<223> Her-2-Her-2-IC1(F)
<400> 76
ccgcctcgag cagcagaaga tccggaagta c 31
<210> 77
<211> 30
<212> DNA
<213> Artificial Sequence
<220>
<223> Her-2-IC1(R)
<400> 77
cgcgactagt ttaagcccct tcggagggtg 30
<210> 78
<211> 7075
<212> DNA
<213> Artificial Sequence
<220>
<223> pAdv164 sequence
<400> 78
cggagtgtat actggcttac tatgttggca ctgatgaggg tgtcagtgaa gtgcttcatg 60
tggcaggaga aaaaaggctg caccggtgcg tcagcagaat atgtgataca ggatatattc 120
cgcttcctcg ctcactgact cgctacgctc ggtcgttcga ctgcggcgag cggaaatggc 180
ttacgaacgg ggcggagatt tcctggaaga tgccaggaag atacttaaca gggaagtgag 240
agggccgcgg caaagccgtt tttccatagg ctccgccccc ctgacaagca tcacgaaatc 300
tgacgctcaa atcagtggtg gcgaaacccg acaggactat aaagatacca ggcgtttccc 360
cctggcggct ccctcgtgcg ctctcctgtt cctgcctttc ggtttaccgg tgtcattccg 420
ctgttatggc cgcgtttgtc tcattccacg cctgacactc agttccgggt aggcagttcg 480
ctccaagctg gactgtatgc acgaaccccc cgttcagtcc gaccgctgcg ccttatccgg 540
taactatcgt cttgagtcca acccggaaag acatgcaaaa gcaccactgg cagcagccac 600
tggtaattga tttagaggag ttagtcttga agtcatgcgc cggttaaggc taaactgaaa 660
ggacaagttt tggtgactgc gctcctccaa gccagttacc tcggttcaaa gagttggtag 720
ctcagagaac cttcgaaaaa ccgccctgca aggcggtttt ttcgttttca gagcaagaga 780
ttacgcgcag accaaaacga tctcaagaag atcatcttat taatcagata aaatatttct 840
agccctcctt tgattagtat attcctatct taaagttact tttatgtgga ggcattaaca 900
tttgttaatg acgtcaaaag gatagcaaga ctagaataaa gctataaagc aagcatataa 960
tattgcgttt catctttaga agcgaatttc gccaatatta taattatcaa aagagagggg 1020
tggcaaacgg tatttggcat tattaggtta aaaaatgtag aaggagagtg aaacccatga 1080
aaaaaataat gctagttttt attacactta tattagttag tctaccaatt gcgcaacaaa 1140
ctgaagcaaa ggatgcatct gcattcaata aagaaaattc aatttcatcc atggcaccac 1200
cagcatctcc gcctgcaagt cctaagacgc caatcgaaaa gaaacacgcg gatgaaatcg 1260
ataagtatat acaaggattg gattacaata aaaacaatgt attagtatac cacggagatg 1320
cagtgacaaa tgtgccgcca agaaaaggtt acaaagatgg aaatgaatat attgttgtgg 1380
agaaaaagaa gaaatccatc aatcaaaata atgcagacat tcaagttgtg aatgcaattt 1440
cgagcctaac ctatccaggt gctctcgtaa aagcgaattc ggaattagta gaaaatcaac 1500
cagatgttct ccctgtaaaa cgtgattcat taacactcag cattgatttg ccaggtatga 1560
ctaatcaaga caataaaata gttgtaaaaa atgccactaa atcaaacgtt aacaacgcag 1620
taaatacatt agtggaaaga tggaatgaaa aatatgctca agcttatcca aatgtaagtg 1680
caaaaattga ttatgatgac gaaatggctt acagtgaatc acaattaatt gcgaaatttg 1740
gtacagcatt taaagctgta aataatagct tgaatgtaaa cttcggcgca atcagtgaag 1800
ggaaaatgca agaagaagtc attagtttta aacaaattta ctataacgtg aatgttaatg 1860
aacctacaag accttccaga tttttcggca aagctgttac taaagagcag ttgcaagcgc 1920
ttggagtgaa tgcagaaaat cctcctgcat atatctcaag tgtggcgtat ggccgtcaag 1980
tttatttgaa attatcaact aattcccata gtactaaagt aaaagctgct tttgatgctg 2040
ccgtaagcgg aaaatctgtc tcaggtgatg tagaactaac aaatatcatc aaaaattctt 2100
ccttcaaagc cgtaatttac ggaggttccg caaaagatga agttcaaatc atcgacggca 2160
acctcggaga cttacgcgat attttgaaaa aaggcgctac ttttaatcga gaaacaccag 2220
gagttcccat tgcttataca acaaacttcc taaaagacaa tgaattagct gttattaaaa 2280
acaactcaga atatattgaa acaacttcaa aagcttatac agatggaaaa attaacatcg 2340
atcactctgg aggatacgtt gctcaattca acatttcttg ggatgaagta aattatgatc 2400
tcgagaccca cctggacatg ctccgccacc tctaccaggg ctgccaggtg gtgcagggaa 2460
acctggaact cacctacctg cccaccaatg ccagcctgtc cttcctgcag gatatccagg 2520
aggtgcaggg ctacgtgctc atcgctcaca accaagtgag gcaggtccca ctgcagaggc 2580
tgcggattgt gcgaggcacc cagctctttg aggacaacta tgccctggcc gtgctagaca 2640
atggagaccc gctgaacaat accacccctg tcacaggggc ctccccagga ggcctgcggg 2700
agctgcagct tcgaagcctc acagagatct tgaaaggagg ggtcttgatc cagcggaacc 2760
cccagctctg ctaccaggac acgattttgt ggaagaatat ccaggagttt gctggctgca 2820
agaagatctt tgggagcctg gcatttctgc cggagagctt tgatggggac ccagcctcca 2880
acactgcccc gctccagcca gagcagctcc aagtgtttga gactctggaa gagatcacag 2940
gttacctata catctcagca tggccggaca gcctgcctga cctcagcgtc ttccagaacc 3000
tgcaagtaat ccggggacga attctgcaca atggcgccta ctcgctgacc ctgcaagggc 3060
tgggcatcag ctggctgggg ctgcgctcac tgagggaact gggcagtgga ctggccctca 3120
tccaccataa cacccacctc tgcttcgtgc acacggtgcc ctgggaccag ctctttcgga 3180
acccgcacca agctctgctc cacactgcca accggccaga ggacgagtgt gtgggcgagg 3240
gcctggcctg ccaccagctg tgcgcccgag ggcagcagaa gatccggaag tacacgatgc 3300
ggagactgct gcaggaaacg gagctggtgg agccgctgac acctagcgga gcgatgccca 3360
accaggcgca gatgcggatc ctgaaagaga cggagctgag gaaggtgaag gtgcttggat 3420
ctggcgcttt tggcacagtc tacaagggca tctggatccc tgatggggag aatgtgaaaa 3480
ttccagtggc catcaaagtg ttgagggaaa acacatcccc caaagccaac aaagaaatct 3540
tagacgaagc atacgtgatg gctggtgtgg gctccccata tgtctcccgc cttctgggca 3600
tctgcctgac atccacggtg cagctggtga cacagcttat gccctatggc tgcctcttag 3660
actaatctag acccgggcca ctaactcaac gctagtagtg gatttaatcc caaatgagcc 3720
aacagaacca gaaccagaaa cagaacaagt aacattggag ttagaaatgg aagaagaaaa 3780
aagcaatgat ttcgtgtgaa taatgcacga aatcattgct tattttttta aaaagcgata 3840
tactagatat aacgaaacaa cgaactgaat aaagaataca aaaaaagagc cacgaccagt 3900
taaagcctga gaaactttaa ctgcgagcct taattgatta ccaccaatca attaaagaag 3960
tcgagaccca aaatttggta aagtatttaa ttactttatt aatcagatac ttaaatatct 4020
gtaaacccat tatatcgggt ttttgagggg atttcaagtc tttaagaaga taccaggcaa 4080
tcaattaaga aaaacttagt tgattgcctt ttttgttgtg attcaacttt gatcgtagct 4140
tctaactaat taattttcgt aagaaaggag aacagctgaa tgaatatccc ttttgttgta 4200
gaaactgtgc ttcatgacgg cttgttaaag tacaaattta aaaatagtaa aattcgctca 4260
atcactacca agccaggtaa aagtaaaggg gctatttttg cgtatcgctc aaaaaaaagc 4320
atgattggcg gacgtggcgt tgttctgact tccgaagaag cgattcacga aaatcaagat 4380
acatttacgc attggacacc aaacgtttat cgttatggta cgtatgcaga cgaaaaccgt 4440
tcatacacta aaggacattc tgaaaacaat ttaagacaaa tcaatacctt ctttattgat 4500
tttgatattc acacggaaaa agaaactatt tcagcaagcg atattttaac aacagctatt 4560
gatttaggtt ttatgcctac gttaattatc aaatctgata aaggttatca agcatatttt 4620
gttttagaaa cgccagtcta tgtgacttca aaatcagaat ttaaatctgt caaagcagcc 4680
aaaataatct cgcaaaatat ccgagaatat tttggaaagt ctttgccagt tgatctaacg 4740
tgcaatcatt ttgggattgc tcgtatacca agaacggaca atgtagaatt ttttgatccc 4800
aattaccgtt attctttcaa agaatggcaa gattggtctt tcaaacaaac agataataag 4860
ggctttactc gttcaagtct aacggtttta agcggtacag aaggcaaaaa acaagtagat 4920
gaaccctggt ttaatctctt attgcacgaa acgaaatttt caggagaaaa gggtttagta 4980
gggcgcaata gcgttatgtt taccctctct ttagcctact ttagttcagg ctattcaatc 5040
gaaacgtgcg aatataatat gtttgagttt aataatcgat tagatcaacc cttagaagaa 5100
aaagaagtaa tcaaaattgt tagaagtgcc tattcagaaa actatcaagg ggctaatagg 5160
gaatacatta ccattctttg caaagcttgg gtatcaagtg atttaaccag taaagattta 5220
tttgtccgtc aagggtggtt taaattcaag aaaaaaagaa gcgaacgtca acgtgttcat 5280
ttgtcagaat ggaaagaaga tttaatggct tatattagcg aaaaaagcga tgtatacaag 5340
ccttatttag cgacgaccaa aaaagagatt agagaagtgc taggcattcc tgaacggaca 5400
ttagataaat tgctgaaggt actgaaggcg aatcaggaaa ttttctttaa gattaaacca 5460
ggaagaaatg gtggcattca acttgctagt gttaaatcat tgttgctatc gatcattaaa 5520
ttaaaaaaag aagaacgaga aagctatata aaggcgctga cagcttcgtt taatttagaa 5580
cgtacattta ttcaagaaac tctaaacaaa ttggcagaac gccccaaaac ggacccacaa 5640
ctcgatttgt ttagctacga tacaggctga aaataaaacc cgcactatgc cattacattt 5700
atatctatga tacgtgtttg tttttctttg ctggctagct taattgctta tatttacctg 5760
caataaagga tttcttactt ccattatact cccattttcc aaaaacatac ggggaacacg 5820
ggaacttatt gtacaggcca cctcatagtt aatggtttcg agccttcctg caatctcatc 5880
catggaaata tattcatccc cctgccggcc tattaatgtg acttttgtgc ccggcggata 5940
ttcctgatcc agctccacca taaattggtc catgcaaatt cggccggcaa ttttcaggcg 6000
ttttcccttc acaaggatgt cggtcccttt caattttcgg agccagccgt ccgcatagcc 6060
tacaggcacc gtcccgatcc atgtgtcttt ttccgctgtg tactcggctc cgtagctgac 6120
gctctcgcct tttctgatca gtttgacatg tgacagtgtc gaatgcaggg taaatgccgg 6180
acgcagctga aacggtatct cgtccgacat gtcagcagac gggcgaaggc catacatgcc 6240
gatgccgaat ctgactgcat taaaaaagcc ttttttcagc cggagtccag cggcgctgtt 6300
cgcgcagtgg accattagat tctttaacgg cagcggagca atcagctctt taaagcgctc 6360
aaactgcatt aagaaatagc ctctttcttt ttcatccgct gtcgcaaaat gggtaaatac 6420
ccctttgcac tttaaacgag ggttgcggtc aagaattgcc atcacgttct gaacttcttc 6480
ctctgttttt acaccaagtc tgttcatccc cgtatcgacc ttcagatgaa aatgaagaga 6540
accttttttc gtgtggcggg ctgcctcctg aagccattca acagaataac ctgttaaggt 6600
cacgtcatac tcagcagcga ttgccacata ctccggggga accgcgccaa gcaccaatat 6660
aggcgccttc aatccctttt tgcgcagtga aatcgcttca tccaaaatgg ccacggccaa 6720
gcatgaagca cctgcgtcaa gagcagcctt tgctgtttct gcatcaccat gcccgtaggc 6780
gtttgctttc acaactgcca tcaagtggac atgttcaccg atatgttttt tcatattgct 6840
gacattttcc tttatcgcgg acaagtcaat ttccgcccac gtatctctgt aaaaaggttt 6900
tgtgctcatg gaaaactcct ctcttttttc agaaaatccc agtacgtaat taagtatttg 6960
agaattaatt ttatattgat taatactaag tttacccagt tttcacctaa aaaacaaatg 7020
atgagataat agctccaaag gctaaagagg actataccaa ctatttgtta attaa 7075
<210> 79
<211> 9
<212> PRT
<213> Artificial Sequence
<220>
<223> HLA-A2 restricted epitopes
<400> 79
His Leu Tyr Gln Gly Cys Gln Val Val
1 5
<210> 80
<211> 9
<212> PRT
<213> Artificial Sequence
<220>
<223> HLA-A2 restricted epitopes
<400> 80
Lys Ile Phe Gly Ser Leu Ala Phe Leu
1 5
<210> 81
<211> 9
<212> PRT
<213> Artificial Sequence
<220>
<223> HLA-A2 restricted epitopes
<400> 81
Arg Leu Leu Gln Glu Thr Glu Leu Val
1 5
<210> 82
<211> 2040
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleotide encoding LLO fused to a PSA protein
<400> 82
atgaaaaaaa taatgctagt ttttattaca cttatattag ttagtctacc aattgcgcaa 60
caaactgaag caaaggatgc atctgcattc aataaagaaa attcaatttc atccatggca 120
ccaccagcat ctccgcctgc aagtcctaag acgccaatcg aaaagaaaca cgcggatgaa 180
atcgataagt atatacaagg attggattac aataaaaaca atgtattagt ataccacgga 240
gatgcagtga caaatgtgcc gccaagaaaa ggttacaaag atggaaatga atatattgtt 300
gtggagaaaa agaagaaatc catcaatcaa aataatgcag acattcaagt tgtgaatgca 360
atttcgagcc taacctatcc aggtgctctc gtaaaagcga attcggaatt agtagaaaat 420
caaccagatg ttctccctgt aaaacgtgat tcattaacac tcagcattga tttgccaggt 480
atgactaatc aagacaataa aatagttgta aaaaatgcca ctaaatcaaa cgttaacaac 540
gcagtaaata cattagtgga aagatggaat gaaaaatatg ctcaagctta tccaaatgta 600
agtgcaaaaa ttgattatga tgacgaaatg gcttacagtg aatcacaatt aattgcgaaa 660
tttggtacag catttaaagc tgtaaataat agcttgaatg taaacttcgg cgcaatcagt 720
gaagggaaaa tgcaagaaga agtcattagt tttaaacaaa tttactataa cgtgaatgtt 780
aatgaaccta caagaccttc cagatttttc ggcaaagctg ttactaaaga gcagttgcaa 840
gcgcttggag tgaatgcaga aaatcctcct gcatatatct caagtgtggc gtatggccgt 900
caagtttatt tgaaattatc aactaattcc catagtacta aagtaaaagc tgcttttgat 960
gctgccgtaa gcggaaaatc tgtctcaggt gatgtagaac taacaaatat catcaaaaat 1020
tcttccttca aagccgtaat ttacggaggt tccgcaaaag atgaagttca aatcatcgac 1080
ggcaacctcg gagacttacg cgatattttg aaaaaaggcg ctacttttaa tcgagaaaca 1140
ccaggagttc ccattgctta tacaacaaac ttcctaaaag acaatgaatt agctgttatt 1200
aaaaacaact cagaatatat tgaaacaact tcaaaagctt atacagatgg aaaaattaac 1260
atcgatcact ctggaggata cgttgctcaa ttcaacattt cttgggatga agtaaattat 1320
gatctcgaga ttgtgggagg ctgggagtgc gagaagcatt cccaaccctg gcaggtgctt 1380
gtggcctctc gtggcagggc agtctgcggc ggtgttctgg tgcaccccca gtgggtcctc 1440
acagctgccc actgcatcag gaacaaaagc gtgatcttgc tgggtcggca cagcctgttt 1500
catcctgaag acacaggcca ggtatttcag gtcagccaca gcttcccaca cccgctctac 1560
gatatgagcc tcctgaagaa tcgattcctc aggccaggtg atgactccag ccacgacctc 1620
atgctgctcc gcctgtcaga gcctgccgag ctcacggatg ctgtgaaggt catggacctg 1680
cccacccagg agccagcact ggggaccacc tgctacgcct caggctgggg cagcattgaa 1740
ccagaggagt tcttgacccc aaagaaactt cagtgtgtgg acctccatgt tatttccaat 1800
gacgtgtgtg cgcaagttca ccctcagaag gtgaccaagt tcatgctgtg tgctggacgc 1860
tggacagggg gcaaaagcac ctgctcgggt gattctgggg gcccacttgt ctgttatggt 1920
gtgcttcaag gtatcacgtc atggggcagt gaaccatgtg ccctgcccga aaggccttcc 1980
ctgtacacca aggtggtgca ttaccggaag tggatcaagg acaccatcgt ggccaacccc 2040
<210> 83
<211> 680
<212> PRT
<213> Artificial Sequence
<220>
<223> LLO fused to a PSA protein
<400> 83
Met Lys Lys Ile Met Leu Val Phe Ile Thr Leu Ile Leu Val Ser Leu
1 5 10 15
Pro Ile Ala Gln Gln Thr Glu Ala Lys Asp Ala Ser Ala Phe Asn Lys
20 25 30
Glu Asn Ser Ile Ser Ser Met Ala Pro Pro Ala Ser Pro Pro Ala Ser
35 40 45
Pro Lys Thr Pro Ile Glu Lys Lys His Ala Asp Glu Ile Asp Lys Tyr
50 55 60
Ile Gln Gly Leu Asp Tyr Asn Lys Asn Asn Val Leu Val Tyr His Gly
65 70 75 80
Asp Ala Val Thr Asn Val Pro Pro Arg Lys Gly Tyr Lys Asp Gly Asn
85 90 95
Glu Tyr Ile Val Val Glu Lys Lys Lys Lys Ser Ile Asn Gln Asn Asn
100 105 110
Ala Asp Ile Gln Val Val Asn Ala Ile Ser Ser Leu Thr Tyr Pro Gly
115 120 125
Ala Leu Val Lys Ala Asn Ser Glu Leu Val Glu Asn Gln Pro Asp Val
130 135 140
Leu Pro Val Lys Arg Asp Ser Leu Thr Leu Ser Ile Asp Leu Pro Gly
145 150 155 160
Met Thr Asn Gln Asp Asn Lys Ile Val Val Lys Asn Ala Thr Lys Ser
165 170 175
Asn Val Asn Asn Ala Val Asn Thr Leu Val Glu Arg Trp Asn Glu Lys
180 185 190
Tyr Ala Gln Ala Tyr Pro Asn Val Ser Ala Lys Ile Asp Tyr Asp Asp
195 200 205
Glu Met Ala Tyr Ser Glu Ser Gln Leu Ile Ala Lys Phe Gly Thr Ala
210 215 220
Phe Lys Ala Val Asn Asn Ser Leu Asn Val Asn Phe Gly Ala Ile Ser
225 230 235 240
Glu Gly Lys Met Gln Glu Glu Val Ile Ser Phe Lys Gln Ile Tyr Tyr
245 250 255
Asn Val Asn Val Asn Glu Pro Thr Arg Pro Ser Arg Phe Phe Gly Lys
260 265 270
Ala Val Thr Lys Glu Gln Leu Gln Ala Leu Gly Val Asn Ala Glu Asn
275 280 285
Pro Pro Ala Tyr Ile Ser Ser Val Ala Tyr Gly Arg Gln Val Tyr Leu
290 295 300
Lys Leu Ser Thr Asn Ser His Ser Thr Lys Val Lys Ala Ala Phe Asp
305 310 315 320
Ala Ala Val Ser Gly Lys Ser Val Ser Gly Asp Val Glu Leu Thr Asn
325 330 335
Ile Ile Lys Asn Ser Ser Phe Lys Ala Val Ile Tyr Gly Gly Ser Ala
340 345 350
Lys Asp Glu Val Gln Ile Ile Asp Gly Asn Leu Gly Asp Leu Arg Asp
355 360 365
Ile Leu Lys Lys Gly Ala Thr Phe Asn Arg Glu Thr Pro Gly Val Pro
370 375 380
Ile Ala Tyr Thr Thr Asn Phe Leu Lys Asp Asn Glu Leu Ala Val Ile
385 390 395 400
Lys Asn Asn Ser Glu Tyr Ile Glu Thr Thr Ser Lys Ala Tyr Thr Asp
405 410 415
Gly Lys Ile Asn Ile Asp His Ser Gly Gly Tyr Val Ala Gln Phe Asn
420 425 430
Ile Ser Trp Asp Glu Val Asn Tyr Asp Leu Glu Ile Val Gly Gly Trp
435 440 445
Glu Cys Glu Lys His Ser Gln Pro Trp Gln Val Leu Val Ala Ser Arg
450 455 460
Gly Arg Ala Val Cys Gly Gly Val Leu Val His Pro Gln Trp Val Leu
465 470 475 480
Thr Ala Ala His Cys Ile Arg Asn Lys Ser Val Ile Leu Leu Gly Arg
485 490 495
His Ser Leu Phe His Pro Glu Asp Thr Gly Gln Val Phe Gln Val Ser
500 505 510
His Ser Phe Pro His Pro Leu Tyr Asp Met Ser Leu Leu Lys Asn Arg
515 520 525
Phe Leu Arg Pro Gly Asp Asp Ser Ser His Asp Leu Met Leu Leu Arg
530 535 540
Leu Ser Glu Pro Ala Glu Leu Thr Asp Ala Val Lys Val Met Asp Leu
545 550 555 560
Pro Thr Gln Glu Pro Ala Leu Gly Thr Thr Cys Tyr Ala Ser Gly Trp
565 570 575
Gly Ser Ile Glu Pro Glu Glu Phe Leu Thr Pro Lys Lys Leu Gln Cys
580 585 590
Val Asp Leu His Val Ile Ser Asn Asp Val Cys Ala Gln Val His Pro
595 600 605
Gln Lys Val Thr Lys Phe Met Leu Cys Ala Gly Arg Trp Thr Gly Gly
610 615 620
Lys Ser Thr Cys Ser Gly Asp Ser Gly Gly Pro Leu Val Cys Tyr Gly
625 630 635 640
Val Leu Gln Gly Ile Thr Ser Trp Gly Ser Glu Pro Cys Ala Leu Pro
645 650 655
Glu Arg Pro Ser Leu Tyr Thr Lys Val Val His Tyr Arg Lys Trp Ile
660 665 670
Lys Asp Thr Ile Val Ala Asn Pro
675 680
<210> 84
<211> 97
<212> PRT
<213> Artificial Sequence
<220>
<223> E7 protein
<400> 84
His Gly Asp Thr Pro Thr Leu His Glu Tyr Met Leu Asp Leu Gln Pro
1 5 10 15
Glu Thr Thr Asp Leu Tyr Cys Tyr Glu Gln Leu Asn Asp Ser Ser Glu
20 25 30
Glu Glu Asp Glu Ile Asp Gly Pro Ala Gly Gln Ala Glu Pro Asp Arg
35 40 45
Ala His Tyr Asn Ile Val Thr Phe Cys Cys Lys Cys Asp Ser Thr Leu
50 55 60
Arg Leu Cys Val Gln Ser Thr His Val Asp Ile Arg Thr Leu Glu Asp
65 70 75 80
Leu Leu Met Gly Thr Leu Gly Ile Val Cys Pro Ile Cys Ser Gln Lys
85 90 95
Pro
<210> 85
<211> 540
<212> PRT
<213> Artificial Sequence
<220>
<223> truncated LLO fused to an E7 protein
<400> 85
Met Lys Lys Ile Met Leu Val Phe Ile Thr Leu Ile Leu Val Ser Leu
1 5 10 15
Pro Ile Ala Gln Gln Thr Glu Ala Lys Asp Ala Ser Ala Phe Asn Lys
20 25 30
Glu Asn Ser Ile Ser Ser Met Ala Pro Pro Ala Ser Pro Pro Ala Ser
35 40 45
Pro Lys Thr Pro Ile Glu Lys Lys His Ala Asp Glu Ile Asp Lys Tyr
50 55 60
Ile Gln Gly Leu Asp Tyr Asn Lys Asn Asn Val Leu Val Tyr His Gly
65 70 75 80
Asp Ala Val Thr Asn Val Pro Pro Arg Lys Gly Tyr Lys Asp Gly Asn
85 90 95
Glu Tyr Ile Val Val Glu Lys Lys Lys Lys Ser Ile Asn Gln Asn Asn
100 105 110
Ala Asp Ile Gln Val Val Asn Ala Ile Ser Ser Leu Thr Tyr Pro Gly
115 120 125
Ala Leu Val Lys Ala Asn Ser Glu Leu Val Glu Asn Gln Pro Asp Val
130 135 140
Leu Pro Val Lys Arg Asp Ser Leu Thr Leu Ser Ile Asp Leu Pro Gly
145 150 155 160
Met Thr Asn Gln Asp Asn Lys Ile Val Val Lys Asn Ala Thr Lys Ser
165 170 175
Asn Val Asn Asn Ala Val Asn Thr Leu Val Glu Arg Trp Asn Glu Lys
180 185 190
Tyr Ala Gln Ala Tyr Pro Asn Val Ser Ala Lys Ile Asp Tyr Asp Asp
195 200 205
Glu Met Ala Tyr Ser Glu Ser Gln Leu Ile Ala Lys Phe Gly Thr Ala
210 215 220
Phe Lys Ala Val Asn Asn Ser Leu Asn Val Asn Phe Gly Ala Ile Ser
225 230 235 240
Glu Gly Lys Met Gln Glu Glu Val Ile Ser Phe Lys Gln Ile Tyr Tyr
245 250 255
Asn Val Asn Val Asn Glu Pro Thr Arg Pro Ser Arg Phe Phe Gly Lys
260 265 270
Ala Val Thr Lys Glu Gln Leu Gln Ala Leu Gly Val Asn Ala Glu Asn
275 280 285
Pro Pro Ala Tyr Ile Ser Ser Val Ala Tyr Gly Arg Gln Val Tyr Leu
290 295 300
Lys Leu Ser Thr Asn Ser His Ser Thr Lys Val Lys Ala Ala Phe Asp
305 310 315 320
Ala Ala Val Ser Gly Lys Ser Val Ser Gly Asp Val Glu Leu Thr Asn
325 330 335
Ile Ile Lys Asn Ser Ser Phe Lys Ala Val Ile Tyr Gly Gly Ser Ala
340 345 350
Lys Asp Glu Val Gln Ile Ile Asp Gly Asn Leu Gly Asp Leu Arg Asp
355 360 365
Ile Leu Lys Lys Gly Ala Thr Phe Asn Arg Glu Thr Pro Gly Val Pro
370 375 380
Ile Ala Tyr Thr Thr Asn Phe Leu Lys Asp Asn Glu Leu Ala Val Ile
385 390 395 400
Lys Asn Asn Ser Glu Tyr Ile Glu Thr Thr Ser Lys Ala Tyr Thr Asp
405 410 415
Gly Lys Ile Asn Ile Asp His Ser Gly Gly Tyr Val Ala Gln Phe Asn
420 425 430
Ile Ser Trp Asp Glu Val Asn Tyr Asp Leu Glu His Gly Asp Thr Pro
435 440 445
Thr Leu His Glu Tyr Met Leu Asp Leu Gln Pro Glu Thr Thr Asp Leu
450 455 460
Tyr Cys Tyr Glu Gln Leu Asn Asp Ser Ser Glu Glu Glu Asp Glu Ile
465 470 475 480
Asp Gly Pro Ala Gly Gln Ala Glu Pro Asp Arg Ala His Tyr Asn Ile
485 490 495
Val Thr Phe Cys Cys Lys Cys Asp Ser Thr Leu Arg Leu Cys Val Gln
500 505 510
Ser Thr His Val Asp Ile Arg Thr Leu Glu Asp Leu Leu Met Gly Thr
515 520 525
Leu Gly Ile Val Cys Pro Ile Cys Ser Gln Lys Pro
530 535 540
<210> 86
<211> 1263
<212> DNA
<213> Artificial Sequence
<220>
<223> nucleic acid encoding Her-2 chimeric protein
<400> 86
gagacccacc tggacatgct ccgccacctc taccagggct gccaggtggt gcagggaaac 60
ctggaactca cctacctgcc caccaatgcc agcctgtcct tcctgcagga tatccaggag 120
gtgcagggct acgtgctcat cgctcacaac caagtgaggc aggtcccact gcagaggctg 180
cggattgtgc gaggcaccca gctctttgag gacaactatg ccctggccgt gctagacaat 240
ggagacccgc tgaacaatac cacccctgtc acaggggcct ccccaggagg cctgcgggag 300
ctgcagcttc gaagcctcac agagatcttg aaaggagggg tcttgatcca gcggaacccc 360
cagctctgct accaggacac gattttgtgg aagaatatcc aggagtttgc tggctgcaag 420
aagatctttg ggagcctggc atttctgccg gagagctttg atggggaccc agcctccaac 480
actgccccgc tccagccaga gcagctccaa gtgtttgaga ctctggaaga gatcacaggt 540
tacctataca tctcagcatg gccggacagc ctgcctgacc tcagcgtctt ccagaacctg 600
caagtaatcc ggggacgaat tctgcacaat ggcgcctact cgctgaccct gcaagggctg 660
ggcatcagct ggctggggct gcgctcactg agggaactgg gcagtggact ggccctcatc 720
caccataaca cccacctctg cttcgtgcac acggtgccct gggaccagct ctttcggaac 780
ccgcaccaag ctctgctcca cactgccaac cggccagagg acgagtgtgt gggcgagggc 840
ctggcctgcc accagctgtg cgcccgaggg cagcagaaga tccggaagta cacgatgcgg 900
agactgctgc aggaaacgga gctggtggag ccgctgacac ctagcggagc gatgcccaac 960
caggcgcaga tgcggatcct gaaagagacg gagctgagga aggtgaaggt gcttggatct 1020
ggcgcttttg gcacagtcta caagggcatc tggatccctg atggggagaa tgtgaaaatt 1080
ccagtggcca tcaaagtgtt gagggaaaac acatccccca aagccaacaa agaaatctta 1140
gacgaagcat acgtgatggc tggtgtgggc tccccatatg tctcccgcct tctgggcatc 1200
tgcctgacat ccacggtgca gctggtgaca cagcttatgc cctatggctg cctcttagac 1260
taa 1263
<210> 87
<211> 419
<212> PRT
<213> Artificial Sequence
<220>
<223> Her-2 chimeric protein
<400> 87
Thr His Leu Asp Met Leu Arg His Leu Tyr Gln Gly Cys Gln Val Val
1 5 10 15
Gln Gly Asn Leu Glu Leu Thr Tyr Leu Pro Thr Asn Ala Ser Leu Ser
20 25 30
Phe Leu Gln Asp Ile Gln Glu Val Gln Gly Tyr Val Leu Ile Ala His
35 40 45
Asn Gln Val Arg Gln Val Pro Leu Gln Arg Leu Arg Ile Val Arg Gly
50 55 60
Thr Gln Leu Phe Glu Asp Asn Tyr Ala Leu Ala Val Leu Asp Asn Gly
65 70 75 80
Asp Pro Leu Asn Asn Thr Thr Pro Val Thr Gly Ala Ser Pro Gly Gly
85 90 95
Leu Arg Glu Leu Gln Leu Arg Ser Leu Thr Glu Ile Leu Lys Gly Gly
100 105 110
Val Leu Ile Gln Arg Asn Pro Gln Leu Cys Tyr Gln Asp Thr Ile Leu
115 120 125
Trp Lys Asn Ile Gln Glu Phe Ala Gly Cys Lys Lys Ile Phe Gly Ser
130 135 140
Leu Ala Phe Leu Pro Glu Ser Phe Asp Gly Asp Pro Ala Ser Asn Thr
145 150 155 160
Ala Pro Leu Gln Pro Glu Gln Leu Gln Val Phe Glu Thr Leu Glu Glu
165 170 175
Ile Thr Gly Tyr Leu Tyr Ile Ser Ala Trp Pro Asp Ser Leu Pro Asp
180 185 190
Leu Ser Val Phe Gln Asn Leu Gln Val Ile Arg Gly Arg Ile Leu His
195 200 205
Asn Gly Ala Tyr Ser Leu Thr Leu Gln Gly Leu Gly Ile Ser Trp Leu
210 215 220
Gly Leu Arg Ser Leu Arg Glu Leu Gly Ser Gly Leu Ala Leu Ile His
225 230 235 240
His Asn Thr His Leu Cys Phe Val His Thr Val Pro Trp Asp Gln Leu
245 250 255
Phe Arg Asn Pro His Gln Ala Leu Leu His Thr Ala Asn Arg Pro Glu
260 265 270
Asp Glu Cys Val Gly Glu Gly Leu Ala Cys His Gln Leu Cys Ala Arg
275 280 285
Gly Gln Gln Lys Ile Arg Lys Tyr Thr Met Arg Arg Leu Leu Gln Glu
290 295 300
Thr Glu Leu Val Glu Pro Leu Thr Pro Ser Gly Ala Met Pro Asn Gln
305 310 315 320
Ala Gln Met Arg Ile Leu Lys Glu Thr Glu Leu Arg Lys Val Lys Val
325 330 335
Leu Gly Ser Gly Ala Phe Gly Thr Val Tyr Lys Gly Ile Trp Ile Pro
340 345 350
Asp Gly Glu Asn Val Lys Ile Pro Val Ala Ile Lys Val Leu Arg Glu
355 360 365
Asn Thr Ser Pro Lys Ala Asn Lys Glu Ile Leu Asp Glu Ala Tyr Val
370 375 380
Met Ala Gly Val Gly Ser Pro Tyr Val Ser Arg Leu Leu Gly Ile Cys
385 390 395 400
Leu Thr Ser Thr Val Gln Leu Val Thr Gln Leu Met Pro Tyr Gly Cys
405 410 415
Leu Leu Asp
<210> 88
<211> 2586
<212> DNA
<213> Artificial Sequence
<220>
<223> open reading frame encoding tLLO fused to cHER2
<400> 88
atgaaaaaaa taatgctagt ttttattaca cttatattag ttagtctacc aattgcgcaa 60
caaactgaag caaaggatgc atctgcattc aataaagaaa attcaatttc atccatggca 120
ccaccagcat ctccgcctgc aagtcctaag acgccaatcg aaaagaaaca cgcggatgaa 180
atcgataagt atatacaagg attggattac aataaaaaca atgtattagt ataccacgga 240
gatgcagtga caaatgtgcc gccaagaaaa ggttacaaag atggaaatga atatattgtt 300
gtggagaaaa agaagaaatc catcaatcaa aataatgcag acattcaagt tgtgaatgca 360
atttcgagcc taacctatcc aggtgctctc gtaaaagcga attcggaatt agtagaaaat 420
caaccagatg ttctccctgt aaaacgtgat tcattaacac tcagcattga tttgccaggt 480
atgactaatc aagacaataa aatagttgta aaaaatgcca ctaaatcaaa cgttaacaac 540
gcagtaaata cattagtgga aagatggaat gaaaaatatg ctcaagctta tccaaatgta 600
agtgcaaaaa ttgattatga tgacgaaatg gcttacagtg aatcacaatt aattgcgaaa 660
tttggtacag catttaaagc tgtaaataat agcttgaatg taaacttcgg cgcaatcagt 720
gaagggaaaa tgcaagaaga agtcattagt tttaaacaaa tttactataa cgtgaatgtt 780
aatgaaccta caagaccttc cagatttttc ggcaaagctg ttactaaaga gcagttgcaa 840
gcgcttggag tgaatgcaga aaatcctcct gcatatatct caagtgtggc gtatggccgt 900
caagtttatt tgaaattatc aactaattcc catagtacta aagtaaaagc tgcttttgat 960
gctgccgtaa gcggaaaatc tgtctcaggt gatgtagaac taacaaatat catcaaaaat 1020
tcttccttca aagccgtaat ttacggaggt tccgcaaaag atgaagttca aatcatcgac 1080
ggcaacctcg gagacttacg cgatattttg aaaaaaggcg ctacttttaa tcgagaaaca 1140
ccaggagttc ccattgctta tacaacaaac ttcctaaaag acaatgaatt agctgttatt 1200
aaaaacaact cagaatatat tgaaacaact tcaaaagctt atacagatgg aaaaattaac 1260
atcgatcact ctggaggata cgttgctcaa ttcaacattt cttgggatga agtaaattat 1320
gatctcgaga cccacctgga catgctccgc cacctctacc agggctgcca ggtggtgcag 1380
ggaaacctgg aactcaccta cctgcccacc aatgccagcc tgtccttcct gcaggatatc 1440
caggaggtgc agggctacgt gctcatcgct cacaaccaag tgaggcaggt cccactgcag 1500
aggctgcgga ttgtgcgagg cacccagctc tttgaggaca actatgccct ggccgtgcta 1560
gacaatggag acccgctgaa caataccacc cctgtcacag gggcctcccc aggaggcctg 1620
cgggagctgc agcttcgaag cctcacagag atcttgaaag gaggggtctt gatccagcgg 1680
aacccccagc tctgctacca ggacacgatt ttgtggaaga atatccagga gtttgctggc 1740
tgcaagaaga tctttgggag cctggcattt ctgccggaga gctttgatgg ggacccagcc 1800
tccaacactg ccccgctcca gccagagcag ctccaagtgt ttgagactct ggaagagatc 1860
acaggttacc tatacatctc agcatggccg gacagcctgc ctgacctcag cgtcttccag 1920
aacctgcaag taatccgggg acgaattctg cacaatggcg cctactcgct gaccctgcaa 1980
gggctgggca tcagctggct ggggctgcgc tcactgaggg aactgggcag tggactggcc 2040
ctcatccacc ataacaccca cctctgcttc gtgcacacgg tgccctggga ccagctcttt 2100
cggaacccgc accaagctct gctccacact gccaaccggc cagaggacga gtgtgtgggc 2160
gagggcctgg cctgccacca gctgtgcgcc cgagggcagc agaagatccg gaagtacacg 2220
atgcggagac tgctgcagga aacggagctg gtggagccgc tgacacctag cggagcgatg 2280
cccaaccagg cgcagatgcg gatcctgaaa gagacggagc tgaggaaggt gaaggtgctt 2340
ggatctggcg cttttggcac agtctacaag ggcatctgga tccctgatgg ggagaatgtg 2400
aaaattccag tggccatcaa agtgttgagg gaaaacacat cccccaaagc caacaaagaa 2460
atcttagacg aagcatacgt gatggctggt gtgggctccc catatgtctc ccgccttctg 2520
ggcatctgcc tgacatccac ggtgcagctg gtgacacagc ttatgcccta tggctgcctc 2580
ttagac 2586
<210> 89
<211> 862
<212> PRT
<213> Artificial Sequence
<220>
<223> a recombinant protein comprising tLLO fused to a cHER2
<400> 89
Met Lys Lys Ile Met Leu Val Phe Ile Thr Leu Ile Leu Val Ser Leu
1 5 10 15
Pro Ile Ala Gln Gln Thr Glu Ala Lys Asp Ala Ser Ala Phe Asn Lys
20 25 30
Glu Asn Ser Ile Ser Ser Met Ala Pro Pro Ala Ser Pro Pro Ala Ser
35 40 45
Pro Lys Thr Pro Ile Glu Lys Lys His Ala Asp Glu Ile Asp Lys Tyr
50 55 60
Ile Gln Gly Leu Asp Tyr Asn Lys Asn Asn Val Leu Val Tyr His Gly
65 70 75 80
Asp Ala Val Thr Asn Val Pro Pro Arg Lys Gly Tyr Lys Asp Gly Asn
85 90 95
Glu Tyr Ile Val Val Glu Lys Lys Lys Lys Ser Ile Asn Gln Asn Asn
100 105 110
Ala Asp Ile Gln Val Val Asn Ala Ile Ser Ser Leu Thr Tyr Pro Gly
115 120 125
Ala Leu Val Lys Ala Asn Ser Glu Leu Val Glu Asn Gln Pro Asp Val
130 135 140
Leu Pro Val Lys Arg Asp Ser Leu Thr Leu Ser Ile Asp Leu Pro Gly
145 150 155 160
Met Thr Asn Gln Asp Asn Lys Ile Val Val Lys Asn Ala Thr Lys Ser
165 170 175
Asn Val Asn Asn Ala Val Asn Thr Leu Val Glu Arg Trp Asn Glu Lys
180 185 190
Tyr Ala Gln Ala Tyr Pro Asn Val Ser Ala Lys Ile Asp Tyr Asp Asp
195 200 205
Glu Met Ala Tyr Ser Glu Ser Gln Leu Ile Ala Lys Phe Gly Thr Ala
210 215 220
Phe Lys Ala Val Asn Asn Ser Leu Asn Val Asn Phe Gly Ala Ile Ser
225 230 235 240
Glu Gly Lys Met Gln Glu Glu Val Ile Ser Phe Lys Gln Ile Tyr Tyr
245 250 255
Asn Val Asn Val Asn Glu Pro Thr Arg Pro Ser Arg Phe Phe Gly Lys
260 265 270
Ala Val Thr Lys Glu Gln Leu Gln Ala Leu Gly Val Asn Ala Glu Asn
275 280 285
Pro Pro Ala Tyr Ile Ser Ser Val Ala Tyr Gly Arg Gln Val Tyr Leu
290 295 300
Lys Leu Ser Thr Asn Ser His Ser Thr Lys Val Lys Ala Ala Phe Asp
305 310 315 320
Ala Ala Val Ser Gly Lys Ser Val Ser Gly Asp Val Glu Leu Thr Asn
325 330 335
Ile Ile Lys Asn Ser Ser Phe Lys Ala Val Ile Tyr Gly Gly Ser Ala
340 345 350
Lys Asp Glu Val Gln Ile Ile Asp Gly Asn Leu Gly Asp Leu Arg Asp
355 360 365
Ile Leu Lys Lys Gly Ala Thr Phe Asn Arg Glu Thr Pro Gly Val Pro
370 375 380
Ile Ala Tyr Thr Thr Asn Phe Leu Lys Asp Asn Glu Leu Ala Val Ile
385 390 395 400
Lys Asn Asn Ser Glu Tyr Ile Glu Thr Thr Ser Lys Ala Tyr Thr Asp
405 410 415
Gly Lys Ile Asn Ile Asp His Ser Gly Gly Tyr Val Ala Gln Phe Asn
420 425 430
Ile Ser Trp Asp Glu Val Asn Tyr Asp Leu Glu Thr His Leu Asp Met
435 440 445
Leu Arg His Leu Tyr Gln Gly Cys Gln Val Val Gln Gly Asn Leu Glu
450 455 460
Leu Thr Tyr Leu Pro Thr Asn Ala Ser Leu Ser Phe Leu Gln Asp Ile
465 470 475 480
Gln Glu Val Gln Gly Tyr Val Leu Ile Ala His Asn Gln Val Arg Gln
485 490 495
Val Pro Leu Gln Arg Leu Arg Ile Val Arg Gly Thr Gln Leu Phe Glu
500 505 510
Asp Asn Tyr Ala Leu Ala Val Leu Asp Asn Gly Asp Pro Leu Asn Asn
515 520 525
Thr Thr Pro Val Thr Gly Ala Ser Pro Gly Gly Leu Arg Glu Leu Gln
530 535 540
Leu Arg Ser Leu Thr Glu Ile Leu Lys Gly Gly Val Leu Ile Gln Arg
545 550 555 560
Asn Pro Gln Leu Cys Tyr Gln Asp Thr Ile Leu Trp Lys Asn Ile Gln
565 570 575
Glu Phe Ala Gly Cys Lys Lys Ile Phe Gly Ser Leu Ala Phe Leu Pro
580 585 590
Glu Ser Phe Asp Gly Asp Pro Ala Ser Asn Thr Ala Pro Leu Gln Pro
595 600 605
Glu Gln Leu Gln Val Phe Glu Thr Leu Glu Glu Ile Thr Gly Tyr Leu
610 615 620
Tyr Ile Ser Ala Trp Pro Asp Ser Leu Pro Asp Leu Ser Val Phe Gln
625 630 635 640
Asn Leu Gln Val Ile Arg Gly Arg Ile Leu His Asn Gly Ala Tyr Ser
645 650 655
Leu Thr Leu Gln Gly Leu Gly Ile Ser Trp Leu Gly Leu Arg Ser Leu
660 665 670
Arg Glu Leu Gly Ser Gly Leu Ala Leu Ile His His Asn Thr His Leu
675 680 685
Cys Phe Val His Thr Val Pro Trp Asp Gln Leu Phe Arg Asn Pro His
690 695 700
Gln Ala Leu Leu His Thr Ala Asn Arg Pro Glu Asp Glu Cys Val Gly
705 710 715 720
Glu Gly Leu Ala Cys His Gln Leu Cys Ala Arg Gly Gln Gln Lys Ile
725 730 735
Arg Lys Tyr Thr Met Arg Arg Leu Leu Gln Glu Thr Glu Leu Val Glu
740 745 750
Pro Leu Thr Pro Ser Gly Ala Met Pro Asn Gln Ala Gln Met Arg Ile
755 760 765
Leu Lys Glu Thr Glu Leu Arg Lys Val Lys Val Leu Gly Ser Gly Ala
770 775 780
Phe Gly Thr Val Tyr Lys Gly Ile Trp Ile Pro Asp Gly Glu Asn Val
785 790 795 800
Lys Ile Pro Val Ala Ile Lys Val Leu Arg Glu Asn Thr Ser Pro Lys
805 810 815
Ala Asn Lys Glu Ile Leu Asp Glu Ala Tyr Val Met Ala Gly Val Gly
820 825 830
Ser Pro Tyr Val Ser Arg Leu Leu Gly Ile Cys Leu Thr Ser Thr Val
835 840 845
Gln Leu Val Thr Gln Leu Met Pro Tyr Gly Cys Leu Leu Asp
850 855 860
Claims (57)
- 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물에 있어서, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 상기 조성물은 항체 또는 이의 기능적 단편을 추가로 포함하는 조성물.
- 제1항에 있어서, 상기 항체 또는 이의 기능적 단편은 다클론 항체, 단클론 항체, Fab 단편, F(ab')2 단편, Fv 단편, 단일 사슬 항체(SCA), 또는 이의 임의의 조합을 포함하는 것인 조성물.
- 제1항 또는 제2항에 있어서, 상기 항체 또는 이의 기능적 단편은 T-세포 수용체 공동-자극 분자, 공동-자극 분자에 결합하는 항원 제시 세포 수용체, 또는 TNF 수용체 수퍼패밀리의 구성원을 포함하는 상기 이종 항원 또는 이의 일부에 결합하는 것인 조성물.
- 제3항에 있어서, 상기 TNF 수용체 수퍼패밀리의 구성원은 글루코코르티코이드-유도 TNF 수용체(GITR), OX40(CD134 수용체), 4-1BB(CD137 수용체) 및 TNFR25로 구성되는 그룹으로부터 선택되는 것인 조성물.
- 제4항에 있어서, 상기 공동-자극 분자에 결합하는 항원 제시 세포 수용체는 CD80 수용체, CD86 수용체 및 CD40 수용체로 구성되는 그룹으로부터 선택되는 것인 조성물.
- 제1항 내지 제5항 중 어느 한 항에 있어서, 제1 오픈 리딩 프레임을 포함하는 상기 핵산 분자는 리스테리아 게놈에 통합되는 것인 조성물.
- 제1항 내지 제5항 중 어느 한 항에 있어서, 제1 오픈 리딩 프레임을 포함하는 상기 핵산 분자는 상기 재조합 리스테리아 균주 내의 플라스미드 내에 있는 것인 조성물.
- 제7항에 있어서, 상기 플라스미드는 항생제 선별의 부재시 상기 재조합 리스 테리아 균주 내에서 안정적으로 유지되는 것인 조성물.
- 제7항에 있어서, 상기 플라스미드는 상기 재조합 리스테리아에 항생제 저항성을 부여하지 않는 것인 조성물.
- 제1항 내지 제9항 중 어느 한 항에 있어서, 상기 이종 항원은 종양-관련 항원인 조성물.
- 제10항에 있어서, 상기 종양-관련 항원은 전립선 특이적 항원(PSA), 인간 유두종 바이러스(HPV) 항원 또는 키메라 Her2/neu 항원인 조성물.
- 제1항 내지 제11항 중 어느 한 항에 있어서, 상기 재조합 리스테리아 균주는 약독화된 것인 조성물.
- 제12항에 있어서, 상기 약독화된 리스테리아는 내인성 유전자에서 돌연변이, 결실, 파괴, 불활성화, 교체, 또는 절단을 포함하는 것인 조성물.
- 제13항에 있어서, 상기 내인성 유전자는 actA 독성 유전자, prfA 독성 유전자, dal 유전자, inlB 유전자, dat 유전자 또는 이의 조합을 포함하는 것인 조성물.
- 제13항 또는 제14항에 있어서, 상기 내인성 유전자는 prfA 유전자인 조성물.
- 제13항 또는 제14항에 있어서, 상기 내인성 유전자는 dal /dat 및 actA 유전자인 조성물.
- 제1항 내지 제15항 중 어느 한 항에 있어서, 제1 오픈 리딩 프레임을 포함하는 상기 핵산은 제2 오픈 리딩 프레임을 추가로 포함하는 것인 조성물.
- 제17항에 있어서, 상기 제2 오픈 리딩 프레임은 D133V 돌연변이를 포함하는 PrfA 단백질을 암호화하고, 상기 PrfA 단백질은 상기 prfA 유전자에서 상기 돌연변이, 결실, 파괴, 불활성화, 교체, 또는 절단을 보완하는 것인 조성물.
- 제1항 내지 제14항, 제16항 또는 제17항 중 어느 한 항에 있어서, 상기 제2 오픈 리딩 프레임은 대사 효소를 암호화하고, 상기 대사 효소는 상기 dal 및 dat 유전자에서 상기 돌연변이, 결실, 파괴, 불활성화, 교체, 또는 절단을 보완하는 것인 조성물.
- 제19항에 있어서, 상기 제2 오픈 리딩 프레임에 의해 암호화되는 상기 대사 효소는 알라닌 라세미화효소 또는 D-아미노산 전이효소인 조성물.
- 제1항 내지 제20항 중 어느 한 항에 있어서, 보강제를 추가로 포함하는 조성물.
- 제21항에 있어서, 상기 보강제는 과립구/대식세포 콜로니-자극 인자(GM-CSF) 단백질, GM-CSF 단백질을 암호화하는 뉴클레오티드 분자, 사포닌 QS21, 모노포스포릴 지질 A, 또는 비메틸화 CpG-함유 올리고뉴클레오티드를 포함하는 것인 조성물.
- 제1항 내지 제22항 중 어느 한 항에 있어서, 상기 리스테리아 균주는 리스테 리아 모노사이토제네스인 조성물.
- 핵산 분자를 포함하는 재조합 리스테리아 균주를 포함하는 면역원성 조성물의 유효량을 대상에 투여하는 단계를 포함하는, 대상에서 증진된 항-종양 T 세포 반응을 유발하는 방법에 있어서, 상기 핵산 분자는 융합 폴리펩티드를 암호화하는 제1 오픈 리딩 프레임을 포함하고, 여기에서 상기 융합 폴리펩티드는 이종 항원이나 이의 단편에 융합된 절단된 리스테리올리신 O(LLO) 단백질, 절단된 ActA 단백질, 또는 PEST 아미노산 서열을 포함하고, 상기 방법은 항체 또는 이의 단편을 포함하는 조성물의 유효량을 상기 대상에 투여하는 단계를 추가로 포함하고, 상기 투여가 상기 대상에서 항-종양 T 세포 반응을 증진시키는 것인 방법.
- 제24항에 있어서, 상기 항체 또는 이의 기능적 단편은 다클론 항체, 단클론 항체, Fab 단편, F(ab')2 단편, Fv 단편, 단일 사슬 항체(SCA), 또는 이의 임의의 조합을 포함하는 것인 방법.
- 제24항 또는 제25항에 있어서, 상기 항체 또는 이의 기능적 단편은 T-세포 수용체 공동-자극 분자, 공동-자극 분자에 결합하는 항원 제시 세포 수용체, 또는 TNF 수용체 수퍼패밀리의 구성원을 포함하는 이종 항원 또는 이의 일부에 결합하는 것인 방법.
- 제26항에 있어서, 상기 TNF 수용체 수퍼패밀리의 구성원은 글루코코르티코이드-유도 TNF 수용체(GITR), OX40(CD134 수용체), 4-1BB(CD137 수용체) 및 TNFR25로 구성되는 그룹으로부터 선택되는 것인 방법.
- 제27항에 있어서, 상기 공동-자극 분자에 결합하는 항원 제시 세포 수용체는 CD80 수용체, CD86 수용체 및 CD40 수용체로 구성되는 그룹으로부터 선택되는 것인 방법.
- 제24항 내지 제28항 중 어느 한 항에 있어서, 제1 오픈 리딩 프레임을 포함하는 상기 핵산 분자는 리스테리아 게놈에 통합되는 것인 방법.
- 제24항 내지 제28항 중 어느 한 항에 있어서, 제1 오픈 리딩 프레임을 포함하는 상기 핵산 분자는 상기 재조합 리스테리아 백신 균주 내의 플라스미드 내에 있는 것인 방법.
- 제30항에 있어서, 상기 플라스미드는 항생제 선별의 부재시 상기 재조합 리 스테리아 균주에 안정적으로 유지되는 것인 방법.
- 제30항에 있어서, 상기 플라스미드는 상기 재조합 리스테리아에 항생제 저항성을 부여하지 않는 것인 방법.
- 제24항 내지 제32항 중 어느 한 항에 있어서, 상기 이종 항원은 종양-관련 항원인 방법.
- 제33항에 있어서, 상기 종양-관련 항원은 전립선 특이적 항원(PSA), 인간 유두종 바이러스(HPV) 항원 또는 Her2/neu 키메라 항원인 방법.
- 제24항 내지 제34항 중 어느 한 항에 있어서, 상기 재조합 리스테리아 균주는 약독화된 것인 방법.
- 제35항에 있어서, 상기 약독화된 리스테리아는 내인성 유전자에서 돌연변이, 결실, 파괴, 불활성화, 교체, 또는 절단을 포함하는 것인 방법.
- 제36항에 있어서, 상기 내인성 유전자는 actA 독성 유전자, prfA 독성 유전자, dal 유전자, inlB 유전자, dat 유전자 또는 이의 조합을 포함하는 것인 방법.
- 제36항 또는 제37항에 있어서, 상기 내인성 유전자는 prfA 유전자인 조성물.
- 제36항 또는 제37항에 있어서, 상기 내인성 유전자는 dal /dat 및 actA 유전자인 조성물.
- 제24항 내지 제37항 중 어느 한 항에 있어서, 제1 오픈 리딩 프레임을 포함하는 상기 핵산은 제2 오픈 리딩 프레임을 추가로 포함하는 것인 조성물.
- 제40항에 있어서, 상기 제2 오픈 리딩 프레임은 D133V 돌연변이를 포함하는 PrfA 단백질을 암호화하고, 상기 PrfA 단백질은 상기 prfA 유전자에서 상기 돌연변이, 결실, 파괴, 불활성화, 교체, 또는 절단을 보완하는 것인 조성물.
- 제24항 내지 제37항, 제39항 또는 제40항 중 어느 한 항에 있어서, 상기 제2 오픈 리딩 프레임은 대사 효소를 암호화하고, 상기 대사 효소는 상기 dal 및 dat 유전자에서 상기 돌연변이, 결실, 파괴, 불활성화, 교체, 또는 절단을 보완하는 것인 조성물.
- 제42항에 있어서, 상기 제2 오픈 리딩 프레임에 의해 암호화되는 상기 대사 효소는 알라닌 라세미화효소 또는 D-아미노산 전이효소인 조성물.
- 제24항 내지 제43항 중 어느 한 항에 있어서, 보강제를 추가로 포함하는 조성물.
- 제44항에 있어서, 상기 보강제는 과립구/대식세포 콜로니-자극 인자(GM-CSF) 단백질, GM-CSF 단백질을 암호화하는 뉴클레오티드 분자, 사포닌 QS21, 모노포스포릴 지질 A, 또는 비메틸화 CpG-함유 올리고뉴클레오티드를 포함하는 것인 조성물.
- 제1항 내지 제22항 중 어느 한 항에 있어서, 상기 리스테리아 균주는 리스테리아 모노사이토제네스인 조성물.
- 제24항 내지 제46항 중 어느 한 항에 있어서, 항체 또는 이의 단편을 포함하는 상기 조성물은 상기 재조합 약독화된 리스테리아 균주를 포함하는 상기 조성물의 투여 전, 이와 동시 또는 다음에 투여되는 방법.
- 제24항 내지 제47항 중 어느 한 항에 있어서, 상기 항-종양 T 세포 반응은 인터페론-감마(INF-γ) 생산 세포의 수준을 증가시키는 것을 포함하는 방법.
- 제24항 내지 제48항 중 어느 한 항에 있어서, 상기 항-종양 T 세포 반응은 T 주효 세포에 의한 종양 침윤의 증가를 포함하는 것인 방법.
- 제49항에 있어서, 상기 T 주효 세포는 CD45+CD8+ T 세포 또는 CD4+Fox3P- T 세포인 방법.
- 제24항 내지 제50항 중 어느 한 항에 있어서, 상기 항-종양 T 세포 반응은 비장 및 종양 미세환경에서 T 조절 세포(Treg)의 빈도에서의 저하를 포함하는 것인 방법.
- 제24항 내지 제51항 중 어느 한 항에 있어서, 상기 항-종양 T 세포 반응은 비장 및 종양 미세환경에서 골수 유래 억제 세포(MDSC)의 빈도에서의 저하를 포함하는 것인 방법.
- 제24항 내지 제52항 중 어느 한 항에 있어서, 상기 방법은 상기 대상에서 항원-특이적 T 세포를 증가시키는 것을 포함하는 방법.
- 제24항 내지 제54항 중 어느 한 항에 있어서, 상기 방법은 대상에서 종양 또는 암을 치료하는 것을 포함하는 방법.
- 제24항 내지 제53항 중 어느 한 항에 있어서, 상기 방법은 암 또는 종양 환자의 생존 시간을 증가시키는 것을 포함하는 방법.
- 제55항 내지 제55항 중 어느 한 항에 있어서, 상기 종양은 유방 종양, 두경부 종양, 자궁경부 종양, 전립선 종양인 방법.
- 제55항 내지 제55항 중 어느 한 항에 있어서, 상기 암은 유방암, 두경부암, 자궁경부암, 전립선암, 항문암, 식도암, 폐암, 흑색종, 골육종, 또는 난소암인 방법.
Applications Claiming Priority (9)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US201462094472P | 2014-12-19 | 2014-12-19 | |
| US201462094349P | 2014-12-19 | 2014-12-19 | |
| US62/094,472 | 2014-12-19 | ||
| US62/094,349 | 2014-12-19 | ||
| US201562147463P | 2015-04-14 | 2015-04-14 | |
| US62/147,463 | 2015-04-14 | ||
| US201562262896P | 2015-12-03 | 2015-12-03 | |
| US62/262,896 | 2015-12-03 | ||
| PCT/US2015/066896 WO2016100929A1 (en) | 2014-12-19 | 2015-12-18 | Combination of listeria-based vaccine with anti-ox40 or anti-gitr antibodies |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| KR20170096012A true KR20170096012A (ko) | 2017-08-23 |
Family
ID=56127737
Family Applications (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| KR1020177019838A Withdrawn KR20170096012A (ko) | 2014-12-19 | 2015-12-18 | 항-ox40 또는 항-gitr 항체와 리스테리아-기반 백신의 조합 |
| KR1020177018025A Withdrawn KR20170092626A (ko) | 2014-12-19 | 2015-12-18 | 재조합 리스테리아 균주의 병용 요법 |
Family Applications After (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| KR1020177018025A Withdrawn KR20170092626A (ko) | 2014-12-19 | 2015-12-18 | 재조합 리스테리아 균주의 병용 요법 |
Country Status (14)
| Country | Link |
|---|---|
| US (2) | US20170368157A1 (ko) |
| EP (2) | EP3234106A4 (ko) |
| JP (2) | JP2018501244A (ko) |
| KR (2) | KR20170096012A (ko) |
| CN (2) | CN107206060A (ko) |
| AU (2) | AU2015364260A1 (ko) |
| CA (2) | CA2971220A1 (ko) |
| HK (2) | HK1246341A1 (ko) |
| IL (2) | IL252680A0 (ko) |
| MA (2) | MA41217A (ko) |
| MX (2) | MX2017008173A (ko) |
| SG (2) | SG11201704662SA (ko) |
| TW (2) | TW201639594A (ko) |
| WO (2) | WO2016100929A1 (ko) |
Families Citing this family (33)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US9012141B2 (en) | 2000-03-27 | 2015-04-21 | Advaxis, Inc. | Compositions and methods comprising KLK3 of FOLH1 antigen |
| CA2829960A1 (en) | 2011-03-11 | 2012-09-20 | John Rothman | Listeria-based adjuvants |
| BR112014022662A2 (pt) | 2012-03-12 | 2017-10-03 | Advaxis Inc | Inibição da função de célula supressora seguindo tratamento de vacina de listeria |
| RS61400B1 (sr) | 2013-05-02 | 2021-02-26 | Anaptysbio Inc | Antitela usmerena protiv programirane smrti-1 (pd-1) |
| CA2947358A1 (en) | 2014-02-18 | 2015-08-27 | Advaxis, Inc. | Biomarker directed multi-target immunotherapy |
| AU2015250111A1 (en) | 2014-04-24 | 2016-12-08 | Advaxis, Inc. | Recombinant listeria vaccine strains and methods of producing the same |
| MA41644A (fr) | 2015-03-03 | 2018-01-09 | Advaxis Inc | Compositions à base de listeria comprenant un système d'expression de minigènes codant pour des peptides, et leurs procédés d'utilisation |
| US20180104284A1 (en) * | 2015-05-13 | 2018-04-19 | Advaxis, Inc. | Immunogenic Listeria-Based Compositions Comprising Truncated Acta-Antigen Fusions And Methods Of Use Thereof |
| JP7114477B2 (ja) | 2015-12-16 | 2022-08-08 | グリットストーン バイオ インコーポレイテッド | 新生抗原の特定、製造、および使用 |
| CN110049777A (zh) | 2016-11-01 | 2019-07-23 | 安奈普泰斯生物有限公司 | 针对程序性死亡-1(pd-1)的抗体 |
| MA46721A (fr) * | 2016-11-07 | 2019-09-11 | Advaxis Inc | Combinaison d'un vaccin à base de listeria avec des anticorps anti-ctla-4 ou anti-cd137 |
| KR20190082850A (ko) | 2016-11-30 | 2019-07-10 | 어드박시스, 인크. | 반복되는 암 돌연변이를 표적화하는 면역원 조성물 및 그것의 사용 방법 |
| PT3565844T (pt) | 2017-01-09 | 2023-05-02 | Tesaro Inc | Métodos de tratamento de cancro com anticorpos anti-pd-1 |
| US11040027B2 (en) | 2017-01-17 | 2021-06-22 | Heparegenix Gmbh | Protein kinase inhibitors for promoting liver regeneration or reducing or preventing hepatocyte death |
| CN109136275B (zh) | 2017-06-19 | 2021-03-16 | 百奥赛图(北京)医药科技股份有限公司 | 人源化gitr基因改造动物模型的制备方法及应用 |
| JP7284156B2 (ja) | 2017-09-19 | 2023-05-30 | アドバクシス, インコーポレイテッド | 細菌またはListeria株の凍結乾燥のための組成物および方法 |
| CN111465989B (zh) | 2017-10-10 | 2024-06-25 | 磨石生物公司 | 使用热点进行的新抗原鉴别 |
| AU2018373154B2 (en) | 2017-11-22 | 2025-08-07 | Seattle Project Corp. | Reducing junction epitope presentation for neoantigens |
| US20210003558A1 (en) * | 2018-03-09 | 2021-01-07 | Advaxis, Inc. | Compositions and methods for evaluating attenuation and infectivity of listeria strains |
| KR102825164B1 (ko) | 2018-03-27 | 2025-06-26 | 브리스톨-마이어스 스큅 컴퍼니 | 자외선 신호를 사용한 단백질 농도의 실시간 모니터링 |
| CN110408634B (zh) * | 2018-04-27 | 2021-08-03 | 苏州若泰医药科技有限公司 | 一种非整合李斯特菌疫苗及抗肿瘤免疫应答方法 |
| CN110579608B (zh) * | 2018-06-11 | 2022-07-08 | 苏州若泰医药科技有限公司 | 一种筛选高表达外源蛋白的非整合减毒李斯特菌菌株的方法 |
| US10925947B2 (en) * | 2018-06-29 | 2021-02-23 | Immatics Biotechnologies Gmbh | A*03 restricted peptides for use in immunotherapy against cancers and related methods |
| WO2020172658A1 (en) | 2019-02-24 | 2020-08-27 | Bristol-Myers Squibb Company | Methods of isolating a protein |
| CN111979162B (zh) * | 2019-05-22 | 2024-02-13 | 上海市公共卫生临床中心 | 重组卡介苗菌株、其制备方法和用途 |
| KR20220012292A (ko) | 2019-05-23 | 2022-02-03 | 브리스톨-마이어스 스큅 컴퍼니 | 세포 배양 배지를 모니터링하는 방법 |
| CN114502587A (zh) * | 2019-07-30 | 2022-05-13 | 普瑞文森生物有限公司 | 通过非耗竭性b细胞抑制剂降低免疫原性的方法和组合物 |
| WO2021098750A1 (en) * | 2019-11-21 | 2021-05-27 | Beigene (Beijing) Co., Ltd. | Methods of cancer treatment with anti-ox40 antibody in comibinaiton with tlr agonists |
| AU2021297245A1 (en) | 2020-06-23 | 2023-02-02 | Illumina Software, Inc. | Methods for diagnosing respiratory pathogens and predicting covid-19 related outcomes |
| JP2023544410A (ja) | 2020-10-05 | 2023-10-23 | ブリストル-マイヤーズ スクイブ カンパニー | タンパク質を濃縮するための方法 |
| KR20240156411A (ko) | 2022-03-09 | 2024-10-29 | 브리스톨-마이어스 스큅 컴퍼니 | 치료 단백질의 일시적 발현 |
| CN114736295B (zh) * | 2022-06-14 | 2022-08-09 | 北京科跃中楷生物技术有限公司 | 一种辣根过氧化物酶标记抗体及其制备方法 |
| WO2024258913A1 (en) * | 2023-06-16 | 2024-12-19 | Wisconsin Alumni Research Foundation | Treatment of solid tumors with a regimen of targeted radionuclide therapy and genetically engineered immune cell therapies |
Family Cites Families (9)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2004500405A (ja) * | 2000-03-29 | 2004-01-08 | ザ トラスティーズ オブ ザ ユニバーシティー オブ ペンシルヴァニア | 抗原の免疫原性を増強するための組成物および方法 |
| US10106619B2 (en) * | 2006-10-04 | 2018-10-23 | La Jolla Institute For Allergy And Immunology | Virus vaccination and treatment methods with OX40 agonist compositions |
| EP1921149A1 (en) * | 2006-11-13 | 2008-05-14 | AEterna Zentaris GmbH | Microorganisms as carriers of nucleotide sequences coding for antigens and protein toxins, process of manufacturing and uses thereof |
| CN101214372A (zh) * | 2008-01-04 | 2008-07-09 | 中国人民解放军第四军医大学 | 一种体内诱导出针对TNF-α分子的自身抗体的蛋白疫苗的构建方法 |
| US9017660B2 (en) * | 2009-11-11 | 2015-04-28 | Advaxis, Inc. | Compositions and methods for prevention of escape mutation in the treatment of Her2/neu over-expressing tumors |
| US20120135033A1 (en) * | 2008-05-19 | 2012-05-31 | Anu Wallecha | Multiple delivery system for heterologous antigens |
| US20110223187A1 (en) * | 2010-02-15 | 2011-09-15 | Vafa Shahabi | Live listeria-based vaccines for central nervous system therapy |
| US20150250837A1 (en) * | 2012-09-20 | 2015-09-10 | Morningside Technology Ventures Ltd. | Oncolytic virus encoding pd-1 binding agents and uses of the same |
| US20140356930A1 (en) * | 2013-06-03 | 2014-12-04 | Panacea Pharmaceuticals | Immune system enhancing immunotherapy for the treatment of cancer |
-
2015
- 2015-12-17 MA MA041217A patent/MA41217A/fr unknown
- 2015-12-17 MA MA041218A patent/MA41218A/fr unknown
- 2015-12-18 EP EP15871241.4A patent/EP3234106A4/en not_active Withdrawn
- 2015-12-18 SG SG11201704662SA patent/SG11201704662SA/en unknown
- 2015-12-18 HK HK18105357.6A patent/HK1246341A1/zh unknown
- 2015-12-18 US US15/533,645 patent/US20170368157A1/en not_active Abandoned
- 2015-12-18 TW TW104142875A patent/TW201639594A/zh unknown
- 2015-12-18 MX MX2017008173A patent/MX2017008173A/es unknown
- 2015-12-18 MX MX2017008187A patent/MX2017008187A/es unknown
- 2015-12-18 CN CN201580074503.6A patent/CN107206060A/zh active Pending
- 2015-12-18 US US15/534,910 patent/US20180153974A1/en not_active Abandoned
- 2015-12-18 AU AU2015364260A patent/AU2015364260A1/en not_active Abandoned
- 2015-12-18 EP EP15871237.2A patent/EP3234148A4/en not_active Withdrawn
- 2015-12-18 CN CN201580069609.7A patent/CN107427565A/zh active Pending
- 2015-12-18 CA CA2971220A patent/CA2971220A1/en not_active Abandoned
- 2015-12-18 SG SG11201704599PA patent/SG11201704599PA/en unknown
- 2015-12-18 AU AU2015364255A patent/AU2015364255A1/en not_active Abandoned
- 2015-12-18 HK HK18104871.6A patent/HK1245331A1/zh unknown
- 2015-12-18 TW TW104142874A patent/TW201636360A/zh unknown
- 2015-12-18 WO PCT/US2015/066896 patent/WO2016100929A1/en not_active Ceased
- 2015-12-18 KR KR1020177019838A patent/KR20170096012A/ko not_active Withdrawn
- 2015-12-18 JP JP2017532925A patent/JP2018501244A/ja active Pending
- 2015-12-18 JP JP2017532905A patent/JP2018501243A/ja active Pending
- 2015-12-18 CA CA2971455A patent/CA2971455A1/en not_active Abandoned
- 2015-12-18 KR KR1020177018025A patent/KR20170092626A/ko not_active Withdrawn
- 2015-12-18 WO PCT/US2015/066885 patent/WO2016100924A1/en not_active Ceased
-
2017
- 2017-06-05 IL IL252680A patent/IL252680A0/en unknown
- 2017-06-07 IL IL252743A patent/IL252743A0/en unknown
Also Published As
| Publication number | Publication date |
|---|---|
| HK1245331A1 (zh) | 2018-08-24 |
| SG11201704599PA (en) | 2017-07-28 |
| US20170368157A1 (en) | 2017-12-28 |
| CA2971220A1 (en) | 2016-06-23 |
| IL252743A0 (en) | 2017-08-31 |
| WO2016100924A1 (en) | 2016-06-23 |
| EP3234148A4 (en) | 2018-10-17 |
| WO2016100929A1 (en) | 2016-06-23 |
| MA41218A (fr) | 2017-10-24 |
| CN107427565A (zh) | 2017-12-01 |
| JP2018501243A (ja) | 2018-01-18 |
| KR20170092626A (ko) | 2017-08-11 |
| SG11201704662SA (en) | 2017-07-28 |
| EP3234106A4 (en) | 2018-07-18 |
| CN107206060A (zh) | 2017-09-26 |
| TW201636360A (zh) | 2016-10-16 |
| MX2017008173A (es) | 2017-09-18 |
| JP2018501244A (ja) | 2018-01-18 |
| IL252680A0 (en) | 2017-08-31 |
| EP3234106A1 (en) | 2017-10-25 |
| EP3234148A1 (en) | 2017-10-25 |
| MX2017008187A (es) | 2017-09-13 |
| HK1246341A1 (zh) | 2018-09-07 |
| AU2015364255A1 (en) | 2017-07-20 |
| US20180153974A1 (en) | 2018-06-07 |
| CA2971455A1 (en) | 2016-06-23 |
| AU2015364260A1 (en) | 2017-07-20 |
| TW201639594A (zh) | 2016-11-16 |
| MA41217A (fr) | 2017-10-24 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| AU2022200643B2 (en) | Listeria-based compositions comprising a peptide minigene expression system and methods of use thereof | |
| CN107206060A (zh) | 基于李斯特菌的疫苗与抗ox40或抗gitr抗体的组合 | |
| JP6039669B2 (ja) | Her2/neu発現腫瘍に対する薬剤の調製における弱毒化組換えリステリアの使用 | |
| JP5985397B2 (ja) | 組換えリステリア株およびそれを含む免疫原性組成物 | |
| JP2022105768A (ja) | 組み換え型リステリアワクチン株およびこれを生産する方法 | |
| US20180104284A1 (en) | Immunogenic Listeria-Based Compositions Comprising Truncated Acta-Antigen Fusions And Methods Of Use Thereof | |
| AU2016281958A1 (en) | Manufacturing device and process for personalized delivery vector-based immunotherapy | |
| KR20160132033A (ko) | t-효과기 세포 대 조절 t 세포 비율을 증가시키기 위한 방법 및 조성물 | |
| KR20170063505A (ko) | 항-종양 반응 유발 목적 리스테리아계 면역원성 조성물 | |
| KR20160130774A (ko) | 바이오마커 지도된 다중-표적 면역치료 | |
| HK1205944A1 (en) | Suppressor cell function inhibition following listeria vaccine treatment | |
| JP6329211B2 (ja) | 脳腫瘍または乳腺腫瘍の発症を遅延させるための医薬の製造における組換えリステリア株の使用 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| PA0105 | International application |
Patent event date: 20170717 Patent event code: PA01051R01D Comment text: International Patent Application |
|
| PG1501 | Laying open of application | ||
| PC1203 | Withdrawal of no request for examination |