DE69737448T2 - Nukleinsäuremoleküle, die für enzyme aus weizen kodieren, welche an der stärkesynthese beteiligt sind - Google Patents
Nukleinsäuremoleküle, die für enzyme aus weizen kodieren, welche an der stärkesynthese beteiligt sind Download PDFInfo
- Publication number
- DE69737448T2 DE69737448T2 DE69737448T DE69737448T DE69737448T2 DE 69737448 T2 DE69737448 T2 DE 69737448T2 DE 69737448 T DE69737448 T DE 69737448T DE 69737448 T DE69737448 T DE 69737448T DE 69737448 T2 DE69737448 T2 DE 69737448T2
- Authority
- DE
- Germany
- Prior art keywords
- dna
- starch
- nucleic acid
- wheat
- sequence
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Expired - Lifetime
Links
- 150000007523 nucleic acids Chemical class 0.000 title claims abstract description 73
- 102000039446 nucleic acids Human genes 0.000 title claims abstract description 71
- 108020004707 nucleic acids Proteins 0.000 title claims abstract description 71
- 241000209140 Triticum Species 0.000 title claims abstract description 64
- 235000021307 Triticum Nutrition 0.000 title claims abstract description 40
- 230000015572 biosynthetic process Effects 0.000 title abstract description 50
- 102000004190 Enzymes Human genes 0.000 title abstract description 39
- 108090000790 Enzymes Proteins 0.000 title abstract description 39
- 238000003786 synthesis reaction Methods 0.000 title abstract description 34
- 241000196324 Embryophyta Species 0.000 claims abstract description 130
- 229920002472 Starch Polymers 0.000 claims abstract description 106
- 108010039811 Starch synthase Proteins 0.000 claims abstract description 63
- 230000000694 effects Effects 0.000 claims abstract description 32
- 230000002829 reductive effect Effects 0.000 claims abstract description 17
- 108020004414 DNA Proteins 0.000 claims description 61
- 108090000623 proteins and genes Proteins 0.000 claims description 60
- 102000004169 proteins and genes Human genes 0.000 claims description 44
- 238000000034 method Methods 0.000 claims description 38
- 230000014509 gene expression Effects 0.000 claims description 26
- 239000002773 nucleotide Substances 0.000 claims description 25
- 125000003729 nucleotide group Chemical group 0.000 claims description 25
- 230000009261 transgenic effect Effects 0.000 claims description 20
- 108091028043 Nucleic acid sequence Proteins 0.000 claims description 17
- 102000053602 DNA Human genes 0.000 claims description 11
- 108090000765 processed proteins & peptides Proteins 0.000 claims description 10
- 125000003275 alpha amino acid group Chemical group 0.000 claims description 9
- 230000001105 regulatory effect Effects 0.000 claims description 9
- 239000000463 material Substances 0.000 claims description 8
- 230000008569 process Effects 0.000 claims description 8
- 108091032973 (ribonucleotides)n+m Proteins 0.000 claims description 7
- 108020005544 Antisense RNA Proteins 0.000 claims description 6
- 239000003184 complementary RNA Substances 0.000 claims description 6
- 230000002068 genetic effect Effects 0.000 claims description 6
- 238000013518 transcription Methods 0.000 claims description 6
- 230000035897 transcription Effects 0.000 claims description 6
- 108090000994 Catalytic RNA Proteins 0.000 claims description 4
- 102000053642 Catalytic RNA Human genes 0.000 claims description 4
- 102000004196 processed proteins & peptides Human genes 0.000 claims description 4
- 230000001902 propagating effect Effects 0.000 claims description 4
- 230000009467 reduction Effects 0.000 claims description 4
- 230000001172 regenerating effect Effects 0.000 claims description 4
- 108091092562 ribozyme Proteins 0.000 claims description 4
- 229940100445 wheat starch Drugs 0.000 claims description 4
- FWMNVWWHGCHHJJ-SKKKGAJSSA-N 4-amino-1-[(2r)-6-amino-2-[[(2r)-2-[[(2r)-2-[[(2r)-2-amino-3-phenylpropanoyl]amino]-3-phenylpropanoyl]amino]-4-methylpentanoyl]amino]hexanoyl]piperidine-4-carboxylic acid Chemical compound C([C@H](C(=O)N[C@H](CC(C)C)C(=O)N[C@H](CCCCN)C(=O)N1CCC(N)(CC1)C(O)=O)NC(=O)[C@H](N)CC=1C=CC=CC=1)C1=CC=CC=C1 FWMNVWWHGCHHJJ-SKKKGAJSSA-N 0.000 claims description 3
- 108091028664 Ribonucleotide Proteins 0.000 claims description 3
- 230000000295 complement effect Effects 0.000 claims description 3
- 238000002360 preparation method Methods 0.000 claims description 3
- 239000002336 ribonucleotide Substances 0.000 claims description 3
- 125000002652 ribonucleotide group Chemical group 0.000 claims description 3
- 229920001184 polypeptide Polymers 0.000 claims description 2
- 230000001131 transforming effect Effects 0.000 claims 1
- 235000019698 starch Nutrition 0.000 abstract description 102
- 239000008107 starch Substances 0.000 abstract description 100
- 239000013598 vector Substances 0.000 abstract description 30
- 210000004027 cell Anatomy 0.000 description 85
- 239000013612 plasmid Substances 0.000 description 31
- 230000009466 transformation Effects 0.000 description 31
- 239000002299 complementary DNA Substances 0.000 description 30
- 238000004519 manufacturing process Methods 0.000 description 25
- 239000012634 fragment Substances 0.000 description 18
- 241000588724 Escherichia coli Species 0.000 description 15
- 239000000047 product Substances 0.000 description 15
- 239000000654 additive Substances 0.000 description 13
- 230000000996 additive effect Effects 0.000 description 11
- 230000000692 anti-sense effect Effects 0.000 description 11
- 230000004048 modification Effects 0.000 description 11
- 238000012986 modification Methods 0.000 description 11
- 239000000126 substance Substances 0.000 description 11
- 229920000856 Amylose Polymers 0.000 description 10
- 108091026890 Coding region Proteins 0.000 description 10
- 244000061456 Solanum tuberosum Species 0.000 description 10
- 235000002595 Solanum tuberosum Nutrition 0.000 description 10
- 210000001519 tissue Anatomy 0.000 description 10
- XLYOFNOQVPJJNP-UHFFFAOYSA-N water Substances O XLYOFNOQVPJJNP-UHFFFAOYSA-N 0.000 description 10
- 238000003780 insertion Methods 0.000 description 9
- 230000037431 insertion Effects 0.000 description 9
- 230000010354 integration Effects 0.000 description 9
- 229920000642 polymer Polymers 0.000 description 9
- 229920000945 Amylopectin Polymers 0.000 description 8
- 210000002257 embryonic structure Anatomy 0.000 description 8
- -1 polyethylene Polymers 0.000 description 8
- WFPZSXYXPSUOPY-ROYWQJLOSA-N ADP alpha-D-glucoside Chemical compound C([C@H]1O[C@H]([C@@H]([C@@H]1O)O)N1C=2N=CN=C(C=2N=C1)N)OP(O)(=O)OP(O)(=O)O[C@H]1O[C@H](CO)[C@@H](O)[C@H](O)[C@H]1O WFPZSXYXPSUOPY-ROYWQJLOSA-N 0.000 description 7
- WFPZSXYXPSUOPY-UHFFFAOYSA-N ADP-mannose Natural products C1=NC=2C(N)=NC=NC=2N1C(C(C1O)O)OC1COP(O)(=O)OP(O)(=O)OC1OC(CO)C(O)C(O)C1O WFPZSXYXPSUOPY-UHFFFAOYSA-N 0.000 description 7
- 229920001503 Glucan Polymers 0.000 description 7
- 229920000881 Modified starch Polymers 0.000 description 7
- 239000000853 adhesive Substances 0.000 description 7
- 230000001070 adhesive effect Effects 0.000 description 7
- 239000003245 coal Substances 0.000 description 7
- 238000012217 deletion Methods 0.000 description 7
- 230000037430 deletion Effects 0.000 description 7
- 239000008187 granular material Substances 0.000 description 7
- 238000009396 hybridization Methods 0.000 description 7
- 239000003550 marker Substances 0.000 description 7
- 235000019426 modified starch Nutrition 0.000 description 7
- 239000006072 paste Substances 0.000 description 7
- 210000002706 plastid Anatomy 0.000 description 7
- 238000012546 transfer Methods 0.000 description 7
- 238000012300 Sequence Analysis Methods 0.000 description 6
- 240000008042 Zea mays Species 0.000 description 6
- 235000002017 Zea mays subsp mays Nutrition 0.000 description 6
- 238000004458 analytical method Methods 0.000 description 6
- 230000006870 function Effects 0.000 description 6
- 239000002609 medium Substances 0.000 description 6
- 230000035772 mutation Effects 0.000 description 6
- 239000000123 paper Substances 0.000 description 6
- 238000012545 processing Methods 0.000 description 6
- 239000004753 textile Substances 0.000 description 6
- 239000004368 Modified starch Substances 0.000 description 5
- 229910019142 PO4 Inorganic materials 0.000 description 5
- 108020004511 Recombinant DNA Proteins 0.000 description 5
- 239000011230 binding agent Substances 0.000 description 5
- 238000012512 characterization method Methods 0.000 description 5
- 150000002170 ethers Chemical class 0.000 description 5
- 238000002474 experimental method Methods 0.000 description 5
- 235000013305 food Nutrition 0.000 description 5
- 238000002955 isolation Methods 0.000 description 5
- 239000000203 mixture Substances 0.000 description 5
- 239000010452 phosphate Substances 0.000 description 5
- NBIIXXVUZAFLBC-UHFFFAOYSA-K phosphate Chemical compound [O-]P([O-])([O-])=O NBIIXXVUZAFLBC-UHFFFAOYSA-K 0.000 description 5
- 210000001938 protoplast Anatomy 0.000 description 5
- 239000000523 sample Substances 0.000 description 5
- 239000000758 substrate Substances 0.000 description 5
- 229920001059 synthetic polymer Polymers 0.000 description 5
- ZCYVEMRRCGMTRW-UHFFFAOYSA-N 7553-56-2 Chemical compound [I] ZCYVEMRRCGMTRW-UHFFFAOYSA-N 0.000 description 4
- 241000589158 Agrobacterium Species 0.000 description 4
- 241000589155 Agrobacterium tumefaciens Species 0.000 description 4
- WQZGKKKJIJFFOK-GASJEMHNSA-N Glucose Natural products OC[C@H]1OC(O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-GASJEMHNSA-N 0.000 description 4
- 108010076504 Protein Sorting Signals Proteins 0.000 description 4
- 235000016383 Zea mays subsp huehuetenangensis Nutrition 0.000 description 4
- 239000002671 adjuvant Substances 0.000 description 4
- 230000001580 bacterial effect Effects 0.000 description 4
- 238000009395 breeding Methods 0.000 description 4
- 230000001488 breeding effect Effects 0.000 description 4
- 229940027138 cambia Drugs 0.000 description 4
- 238000010367 cloning Methods 0.000 description 4
- KXZOIWWTXOCYKR-UHFFFAOYSA-M diclofenac potassium Chemical compound [K+].[O-]C(=O)CC1=CC=CC=C1NC1=C(Cl)C=CC=C1Cl KXZOIWWTXOCYKR-UHFFFAOYSA-M 0.000 description 4
- 239000003814 drug Substances 0.000 description 4
- 238000004520 electroporation Methods 0.000 description 4
- 239000008103 glucose Substances 0.000 description 4
- 239000011630 iodine Substances 0.000 description 4
- 229910052740 iodine Inorganic materials 0.000 description 4
- 235000009973 maize Nutrition 0.000 description 4
- 238000010369 molecular cloning Methods 0.000 description 4
- 230000036961 partial effect Effects 0.000 description 4
- 235000012015 potatoes Nutrition 0.000 description 4
- 210000001236 prokaryotic cell Anatomy 0.000 description 4
- 239000002994 raw material Substances 0.000 description 4
- 238000012216 screening Methods 0.000 description 4
- 239000007787 solid Substances 0.000 description 4
- 238000010561 standard procedure Methods 0.000 description 4
- 108090000344 1,4-alpha-Glucan Branching Enzyme Proteins 0.000 description 3
- 102000003925 1,4-alpha-Glucan Branching Enzyme Human genes 0.000 description 3
- 108700023224 Glucose-1-phosphate adenylyltransferases Proteins 0.000 description 3
- 108010001483 Glycogen Synthase Proteins 0.000 description 3
- 240000007594 Oryza sativa Species 0.000 description 3
- 235000007164 Oryza sativa Nutrition 0.000 description 3
- 240000004713 Pisum sativum Species 0.000 description 3
- 235000010582 Pisum sativum Nutrition 0.000 description 3
- 239000004698 Polyethylene Substances 0.000 description 3
- 102000044159 Ubiquitin Human genes 0.000 description 3
- 108090000848 Ubiquitin Proteins 0.000 description 3
- 239000004480 active ingredient Substances 0.000 description 3
- 230000004071 biological effect Effects 0.000 description 3
- 230000033228 biological regulation Effects 0.000 description 3
- 125000003178 carboxy group Chemical group [H]OC(*)=O 0.000 description 3
- 235000013339 cereals Nutrition 0.000 description 3
- 238000007385 chemical modification Methods 0.000 description 3
- 239000002537 cosmetic Substances 0.000 description 3
- 229920001971 elastomer Polymers 0.000 description 3
- 238000005516 engineering process Methods 0.000 description 3
- 230000004927 fusion Effects 0.000 description 3
- 238000001879 gelation Methods 0.000 description 3
- 238000010353 genetic engineering Methods 0.000 description 3
- 125000002791 glucosyl group Chemical group C1([C@H](O)[C@@H](O)[C@H](O)[C@H](O1)CO)* 0.000 description 3
- 150000004676 glycans Chemical class 0.000 description 3
- 230000007062 hydrolysis Effects 0.000 description 3
- 238000006460 hydrolysis reaction Methods 0.000 description 3
- 238000001727 in vivo Methods 0.000 description 3
- 230000014759 maintenance of location Effects 0.000 description 3
- 230000004060 metabolic process Effects 0.000 description 3
- 238000002703 mutagenesis Methods 0.000 description 3
- 231100000350 mutagenesis Toxicity 0.000 description 3
- 239000002245 particle Substances 0.000 description 3
- 230000035699 permeability Effects 0.000 description 3
- 230000000704 physical effect Effects 0.000 description 3
- 229920000573 polyethylene Polymers 0.000 description 3
- 229920001282 polysaccharide Polymers 0.000 description 3
- 239000005017 polysaccharide Substances 0.000 description 3
- 239000000843 powder Substances 0.000 description 3
- 235000009566 rice Nutrition 0.000 description 3
- 239000004576 sand Substances 0.000 description 3
- 239000002689 soil Substances 0.000 description 3
- 230000008961 swelling Effects 0.000 description 3
- LWTDZKXXJRRKDG-KXBFYZLASA-N (-)-phaseollin Chemical compound C1OC2=CC(O)=CC=C2[C@H]2[C@@H]1C1=CC=C3OC(C)(C)C=CC3=C1O2 LWTDZKXXJRRKDG-KXBFYZLASA-N 0.000 description 2
- 241000589156 Agrobacterium rhizogenes Species 0.000 description 2
- OBMZMSLWNNWEJA-XNCRXQDQSA-N C1=CC=2C(C[C@@H]3NC(=O)[C@@H](NC(=O)[C@H](NC(=O)N(CC#CCN(CCCC[C@H](NC(=O)[C@@H](CC4=CC=CC=C4)NC3=O)C(=O)N)CC=C)NC(=O)[C@@H](N)C)CC3=CNC4=C3C=CC=C4)C)=CNC=2C=C1 Chemical compound C1=CC=2C(C[C@@H]3NC(=O)[C@@H](NC(=O)[C@H](NC(=O)N(CC#CCN(CCCC[C@H](NC(=O)[C@@H](CC4=CC=CC=C4)NC3=O)C(=O)N)CC=C)NC(=O)[C@@H](N)C)CC3=CNC4=C3C=CC=C4)C)=CNC=2C=C1 OBMZMSLWNNWEJA-XNCRXQDQSA-N 0.000 description 2
- 240000005979 Hordeum vulgare Species 0.000 description 2
- 235000007340 Hordeum vulgare Nutrition 0.000 description 2
- 206010020649 Hyperkeratosis Diseases 0.000 description 2
- 241000209510 Liliopsida Species 0.000 description 2
- 101710176384 Peptide 1 Proteins 0.000 description 2
- 108010043943 Starch Phosphorylase Proteins 0.000 description 2
- 235000005824 Zea mays ssp. parviglumis Nutrition 0.000 description 2
- 239000002253 acid Substances 0.000 description 2
- 125000000539 amino acid group Chemical group 0.000 description 2
- 239000003242 anti bacterial agent Substances 0.000 description 2
- 101150103518 bar gene Proteins 0.000 description 2
- 230000009286 beneficial effect Effects 0.000 description 2
- 230000003115 biocidal effect Effects 0.000 description 2
- 239000003139 biocide Substances 0.000 description 2
- 238000005266 casting Methods 0.000 description 2
- 238000004113 cell culture Methods 0.000 description 2
- 238000001311 chemical methods and process Methods 0.000 description 2
- 239000011248 coating agent Substances 0.000 description 2
- 238000000576 coating method Methods 0.000 description 2
- 235000005822 corn Nutrition 0.000 description 2
- 230000007850 degeneration Effects 0.000 description 2
- 230000001419 dependent effect Effects 0.000 description 2
- 239000005546 dideoxynucleotide Substances 0.000 description 2
- 235000019621 digestibility Nutrition 0.000 description 2
- 238000010790 dilution Methods 0.000 description 2
- 239000012895 dilution Substances 0.000 description 2
- 239000006185 dispersion Substances 0.000 description 2
- 238000007323 disproportionation reaction Methods 0.000 description 2
- 229940079593 drug Drugs 0.000 description 2
- 230000002255 enzymatic effect Effects 0.000 description 2
- 230000032050 esterification Effects 0.000 description 2
- 238000005886 esterification reaction Methods 0.000 description 2
- 210000003527 eukaryotic cell Anatomy 0.000 description 2
- 239000003337 fertilizer Substances 0.000 description 2
- 239000000945 filler Substances 0.000 description 2
- 230000008014 freezing Effects 0.000 description 2
- 238000007710 freezing Methods 0.000 description 2
- 238000001502 gel electrophoresis Methods 0.000 description 2
- 239000010440 gypsum Substances 0.000 description 2
- 229910052602 gypsum Inorganic materials 0.000 description 2
- 230000002363 herbicidal effect Effects 0.000 description 2
- 239000004009 herbicide Substances 0.000 description 2
- 230000006872 improvement Effects 0.000 description 2
- 238000000338 in vitro Methods 0.000 description 2
- 238000002347 injection Methods 0.000 description 2
- 239000007924 injection Substances 0.000 description 2
- BPHPUYQFMNQIOC-NXRLNHOXSA-N isopropyl beta-D-thiogalactopyranoside Chemical compound CC(C)S[C@@H]1O[C@H](CO)[C@H](O)[C@H](O)[C@H]1O BPHPUYQFMNQIOC-NXRLNHOXSA-N 0.000 description 2
- 229930027917 kanamycin Natural products 0.000 description 2
- 229960000318 kanamycin Drugs 0.000 description 2
- SBUJHOSQTJFQJX-NOAMYHISSA-N kanamycin Chemical compound O[C@@H]1[C@@H](O)[C@H](O)[C@@H](CN)O[C@@H]1O[C@H]1[C@H](O)[C@@H](O[C@@H]2[C@@H]([C@@H](N)[C@H](O)[C@@H](CO)O2)O)[C@H](N)C[C@@H]1N SBUJHOSQTJFQJX-NOAMYHISSA-N 0.000 description 2
- 229930182823 kanamycin A Natural products 0.000 description 2
- 239000002649 leather substitute Substances 0.000 description 2
- 239000007788 liquid Substances 0.000 description 2
- 230000004807 localization Effects 0.000 description 2
- 230000003647 oxidation Effects 0.000 description 2
- 238000007254 oxidation reaction Methods 0.000 description 2
- 230000007030 peptide scission Effects 0.000 description 2
- 239000000575 pesticide Substances 0.000 description 2
- 230000000243 photosynthetic effect Effects 0.000 description 2
- 238000004161 plant tissue culture Methods 0.000 description 2
- 239000004033 plastic Substances 0.000 description 2
- 229920003023 plastic Polymers 0.000 description 2
- 238000006116 polymerization reaction Methods 0.000 description 2
- 230000032361 posttranscriptional gene silencing Effects 0.000 description 2
- 230000009257 reactivity Effects 0.000 description 2
- 230000006798 recombination Effects 0.000 description 2
- 238000005215 recombination Methods 0.000 description 2
- 238000011160 research Methods 0.000 description 2
- YGSDEFSMJLZEOE-UHFFFAOYSA-N salicylic acid Chemical compound OC(=O)C1=CC=CC=C1O YGSDEFSMJLZEOE-UHFFFAOYSA-N 0.000 description 2
- 239000010802 sludge Substances 0.000 description 2
- 239000000243 solution Substances 0.000 description 2
- 238000001179 sorption measurement Methods 0.000 description 2
- 241000894007 species Species 0.000 description 2
- 238000005507 spraying Methods 0.000 description 2
- 238000010186 staining Methods 0.000 description 2
- 238000006467 substitution reaction Methods 0.000 description 2
- 238000010257 thawing Methods 0.000 description 2
- 230000008719 thickening Effects 0.000 description 2
- 235000013311 vegetables Nutrition 0.000 description 2
- 238000009941 weaving Methods 0.000 description 2
- GMKMEZVLHJARHF-UHFFFAOYSA-N 2,6-diaminopimelic acid Chemical compound OC(=O)C(N)CCCC(N)C(O)=O GMKMEZVLHJARHF-UHFFFAOYSA-N 0.000 description 1
- ZBMRKNMTMPPMMK-UHFFFAOYSA-N 2-amino-4-[hydroxy(methyl)phosphoryl]butanoic acid;azane Chemical compound [NH4+].CP(O)(=O)CCC(N)C([O-])=O ZBMRKNMTMPPMMK-UHFFFAOYSA-N 0.000 description 1
- 108010043797 4-alpha-glucanotransferase Proteins 0.000 description 1
- QTBSBXVTEAMEQO-UHFFFAOYSA-M Acetate Chemical compound CC([O-])=O QTBSBXVTEAMEQO-UHFFFAOYSA-M 0.000 description 1
- 235000007319 Avena orientalis Nutrition 0.000 description 1
- 244000075850 Avena orientalis Species 0.000 description 1
- 241000894006 Bacteria Species 0.000 description 1
- 108010006654 Bleomycin Proteins 0.000 description 1
- 241000283707 Capra Species 0.000 description 1
- 241000701489 Cauliflower mosaic virus Species 0.000 description 1
- 241000195585 Chlamydomonas Species 0.000 description 1
- 241000195597 Chlamydomonas reinhardtii Species 0.000 description 1
- KRKNYBCHXYNGOX-UHFFFAOYSA-K Citrate Chemical compound [O-]C(=O)CC(O)(CC([O-])=O)C([O-])=O KRKNYBCHXYNGOX-UHFFFAOYSA-K 0.000 description 1
- 241000287937 Colinus Species 0.000 description 1
- 108091035707 Consensus sequence Proteins 0.000 description 1
- AHCYMLUZIRLXAA-SHYZEUOFSA-N Deoxyuridine 5'-triphosphate Chemical compound O1[C@H](COP(O)(=O)OP(O)(=O)OP(O)(O)=O)[C@@H](O)C[C@@H]1N1C(=O)NC(=O)C=C1 AHCYMLUZIRLXAA-SHYZEUOFSA-N 0.000 description 1
- YQYJSBFKSSDGFO-UHFFFAOYSA-N Epihygromycin Natural products OC1C(O)C(C(=O)C)OC1OC(C(=C1)O)=CC=C1C=C(C)C(=O)NC1C(O)C(O)C2OCOC2C1O YQYJSBFKSSDGFO-UHFFFAOYSA-N 0.000 description 1
- 229920002148 Gellan gum Polymers 0.000 description 1
- 108010073178 Glucan 1,4-alpha-Glucosidase Proteins 0.000 description 1
- 229920002527 Glycogen Polymers 0.000 description 1
- 101100288095 Klebsiella pneumoniae neo gene Proteins 0.000 description 1
- 239000006142 Luria-Bertani Agar Substances 0.000 description 1
- 240000003183 Manihot esculenta Species 0.000 description 1
- 235000016735 Manihot esculenta subsp esculenta Nutrition 0.000 description 1
- 229910002651 NO3 Inorganic materials 0.000 description 1
- NHNBFGGVMKEFGY-UHFFFAOYSA-N Nitrate Chemical compound [O-][N+]([O-])=O NHNBFGGVMKEFGY-UHFFFAOYSA-N 0.000 description 1
- 239000000020 Nitrocellulose Substances 0.000 description 1
- 241000283973 Oryctolagus cuniculus Species 0.000 description 1
- 241000237988 Patellidae Species 0.000 description 1
- 101710163504 Phaseolin Proteins 0.000 description 1
- NBIIXXVUZAFLBC-UHFFFAOYSA-N Phosphoric acid Chemical compound OP(O)(O)=O NBIIXXVUZAFLBC-UHFFFAOYSA-N 0.000 description 1
- 108091000080 Phosphotransferase Proteins 0.000 description 1
- 208000020584 Polyploidy Diseases 0.000 description 1
- 229920005830 Polyurethane Foam Polymers 0.000 description 1
- 238000012356 Product development Methods 0.000 description 1
- 108091034057 RNA (poly(A)) Proteins 0.000 description 1
- 235000007238 Secale cereale Nutrition 0.000 description 1
- 244000082988 Secale cereale Species 0.000 description 1
- 238000002105 Southern blotting Methods 0.000 description 1
- CZMRCDWAGMRECN-UGDNZRGBSA-N Sucrose Chemical compound O[C@H]1[C@H](O)[C@@H](CO)O[C@@]1(CO)O[C@@H]1[C@H](O)[C@@H](O)[C@H](O)[C@@H](CO)O1 CZMRCDWAGMRECN-UGDNZRGBSA-N 0.000 description 1
- 229930006000 Sucrose Natural products 0.000 description 1
- QAOWNCQODCNURD-UHFFFAOYSA-L Sulfate Chemical compound [O-]S([O-])(=O)=O QAOWNCQODCNURD-UHFFFAOYSA-L 0.000 description 1
- 239000004826 Synthetic adhesive Substances 0.000 description 1
- 239000006180 TBST buffer Substances 0.000 description 1
- 241000700605 Viruses Species 0.000 description 1
- 108010055615 Zein Proteins 0.000 description 1
- 238000010521 absorption reaction Methods 0.000 description 1
- 238000010306 acid treatment Methods 0.000 description 1
- 239000012190 activator Substances 0.000 description 1
- 230000006978 adaptation Effects 0.000 description 1
- 230000032683 aging Effects 0.000 description 1
- 150000005215 alkyl ethers Chemical class 0.000 description 1
- 230000008848 allosteric regulation Effects 0.000 description 1
- XAGFODPZIPBFFR-UHFFFAOYSA-N aluminium Chemical compound [Al] XAGFODPZIPBFFR-UHFFFAOYSA-N 0.000 description 1
- 229910052782 aluminium Inorganic materials 0.000 description 1
- 229940088710 antibiotic agent Drugs 0.000 description 1
- 238000013459 approach Methods 0.000 description 1
- 238000003556 assay Methods 0.000 description 1
- 238000003149 assay kit Methods 0.000 description 1
- 235000015173 baked goods and baking mixes Nutrition 0.000 description 1
- 230000008901 benefit Effects 0.000 description 1
- 239000000440 bentonite Substances 0.000 description 1
- 229910000278 bentonite Inorganic materials 0.000 description 1
- SVPXDRXYRYOSEX-UHFFFAOYSA-N bentoquatam Chemical compound O.O=[Si]=O.O=[Al]O[Al]=O SVPXDRXYRYOSEX-UHFFFAOYSA-N 0.000 description 1
- RNBGYGVWRKECFJ-ARQDHWQXSA-J beta-D-fructofuranose 1,6-bisphosphate(4-) Chemical compound O[C@H]1[C@H](O)[C@@](O)(COP([O-])([O-])=O)O[C@@H]1COP([O-])([O-])=O RNBGYGVWRKECFJ-ARQDHWQXSA-J 0.000 description 1
- 102000005936 beta-Galactosidase Human genes 0.000 description 1
- 108010005774 beta-Galactosidase Proteins 0.000 description 1
- 230000008238 biochemical pathway Effects 0.000 description 1
- 230000008827 biological function Effects 0.000 description 1
- 238000010170 biological method Methods 0.000 description 1
- 238000004061 bleaching Methods 0.000 description 1
- 229960001561 bleomycin Drugs 0.000 description 1
- OYVAGSVQBOHSSS-UAPAGMARSA-O bleomycin A2 Chemical compound N([C@H](C(=O)N[C@H](C)[C@@H](O)[C@H](C)C(=O)N[C@@H]([C@H](O)C)C(=O)NCCC=1SC=C(N=1)C=1SC=C(N=1)C(=O)NCCC[S+](C)C)[C@@H](O[C@H]1[C@H]([C@@H](O)[C@H](O)[C@H](CO)O1)O[C@@H]1[C@H]([C@@H](OC(N)=O)[C@H](O)[C@@H](CO)O1)O)C=1N=CNC=1)C(=O)C1=NC([C@H](CC(N)=O)NC[C@H](N)C(N)=O)=NC(N)=C1C OYVAGSVQBOHSSS-UAPAGMARSA-O 0.000 description 1
- 230000000903 blocking effect Effects 0.000 description 1
- 238000010805 cDNA synthesis kit Methods 0.000 description 1
- 239000002775 capsule Substances 0.000 description 1
- 230000015556 catabolic process Effects 0.000 description 1
- 230000034303 cell budding Effects 0.000 description 1
- 239000001913 cellulose Substances 0.000 description 1
- 229920002678 cellulose Polymers 0.000 description 1
- 230000008859 change Effects 0.000 description 1
- 239000003610 charcoal Substances 0.000 description 1
- 238000006243 chemical reaction Methods 0.000 description 1
- 239000003795 chemical substances by application Substances 0.000 description 1
- 210000003763 chloroplast Anatomy 0.000 description 1
- 238000004587 chromatography analysis Methods 0.000 description 1
- 230000009918 complex formation Effects 0.000 description 1
- 239000002131 composite material Substances 0.000 description 1
- 230000021615 conjugation Effects 0.000 description 1
- 238000010276 construction Methods 0.000 description 1
- 239000004035 construction material Substances 0.000 description 1
- 238000009402 cross-breeding Methods 0.000 description 1
- 238000002425 crystallisation Methods 0.000 description 1
- 230000008025 crystallization Effects 0.000 description 1
- 238000005520 cutting process Methods 0.000 description 1
- 210000000172 cytosol Anatomy 0.000 description 1
- 238000000354 decomposition reaction Methods 0.000 description 1
- 230000007547 defect Effects 0.000 description 1
- 238000006731 degradation reaction Methods 0.000 description 1
- 230000018044 dehydration Effects 0.000 description 1
- 238000006297 dehydration reaction Methods 0.000 description 1
- 238000011161 development Methods 0.000 description 1
- 230000018109 developmental process Effects 0.000 description 1
- 238000009792 diffusion process Methods 0.000 description 1
- 235000021186 dishes Nutrition 0.000 description 1
- 238000009826 distribution Methods 0.000 description 1
- 239000000428 dust Substances 0.000 description 1
- 238000004043 dyeing Methods 0.000 description 1
- 210000005069 ears Anatomy 0.000 description 1
- 235000013399 edible fruits Nutrition 0.000 description 1
- 230000000408 embryogenic effect Effects 0.000 description 1
- 239000000839 emulsion Substances 0.000 description 1
- ZOOODBUHSVUZEM-UHFFFAOYSA-N ethoxymethanedithioic acid Chemical compound CCOC(S)=S ZOOODBUHSVUZEM-UHFFFAOYSA-N 0.000 description 1
- 239000003925 fat Substances 0.000 description 1
- 238000000855 fermentation Methods 0.000 description 1
- 230000004151 fermentation Effects 0.000 description 1
- 239000000835 fiber Substances 0.000 description 1
- 239000012467 final product Substances 0.000 description 1
- 239000010419 fine particle Substances 0.000 description 1
- 230000037406 food intake Effects 0.000 description 1
- 239000003205 fragrance Substances 0.000 description 1
- 108020001507 fusion proteins Proteins 0.000 description 1
- 102000037865 fusion proteins Human genes 0.000 description 1
- 239000000499 gel Substances 0.000 description 1
- 238000012239 gene modification Methods 0.000 description 1
- 230000005017 genetic modification Effects 0.000 description 1
- 235000013617 genetically modified food Nutrition 0.000 description 1
- 239000003292 glue Substances 0.000 description 1
- 229940096919 glycogen Drugs 0.000 description 1
- PCHJSUWPFVWCPO-UHFFFAOYSA-N gold Chemical compound [Au] PCHJSUWPFVWCPO-UHFFFAOYSA-N 0.000 description 1
- 239000010931 gold Substances 0.000 description 1
- 229910052737 gold Inorganic materials 0.000 description 1
- 238000009499 grossing Methods 0.000 description 1
- 239000001963 growth medium Substances 0.000 description 1
- 150000004820 halides Chemical class 0.000 description 1
- 238000010438 heat treatment Methods 0.000 description 1
- 238000002744 homologous recombination Methods 0.000 description 1
- 230000006801 homologous recombination Effects 0.000 description 1
- 125000002887 hydroxy group Chemical group [H]O* 0.000 description 1
- 230000001900 immune effect Effects 0.000 description 1
- 201000001881 impotence Diseases 0.000 description 1
- 230000006698 induction Effects 0.000 description 1
- 239000003112 inhibitor Substances 0.000 description 1
- 230000002401 inhibitory effect Effects 0.000 description 1
- 230000005764 inhibitory process Effects 0.000 description 1
- 238000011835 investigation Methods 0.000 description 1
- 150000002500 ions Chemical class 0.000 description 1
- 238000002372 labelling Methods 0.000 description 1
- 101150066555 lacZ gene Proteins 0.000 description 1
- 150000002632 lipids Chemical class 0.000 description 1
- 210000001161 mammalian embryo Anatomy 0.000 description 1
- 229940034008 mannitol / sorbitol Drugs 0.000 description 1
- 230000007246 mechanism Effects 0.000 description 1
- 238000000520 microinjection Methods 0.000 description 1
- 239000002557 mineral fiber Substances 0.000 description 1
- 238000002156 mixing Methods 0.000 description 1
- 238000001823 molecular biology technique Methods 0.000 description 1
- 239000000178 monomer Substances 0.000 description 1
- 229920001220 nitrocellulos Polymers 0.000 description 1
- 235000012149 noodles Nutrition 0.000 description 1
- 239000003921 oil Substances 0.000 description 1
- 230000003287 optical effect Effects 0.000 description 1
- 238000005457 optimization Methods 0.000 description 1
- 150000007524 organic acids Chemical class 0.000 description 1
- 235000005985 organic acids Nutrition 0.000 description 1
- 230000003204 osmotic effect Effects 0.000 description 1
- 230000002018 overexpression Effects 0.000 description 1
- 238000004806 packaging method and process Methods 0.000 description 1
- 239000003973 paint Substances 0.000 description 1
- FJKROLUGYXJWQN-UHFFFAOYSA-N papa-hydroxy-benzoic acid Natural products OC(=O)C1=CC=C(O)C=C1 FJKROLUGYXJWQN-UHFFFAOYSA-N 0.000 description 1
- 230000037361 pathway Effects 0.000 description 1
- 239000008188 pellet Substances 0.000 description 1
- LWTDZKXXJRRKDG-UHFFFAOYSA-N phaseollin Natural products C1OC2=CC(O)=CC=C2C2C1C1=CC=C3OC(C)(C)C=CC3=C1O2 LWTDZKXXJRRKDG-UHFFFAOYSA-N 0.000 description 1
- 102000020233 phosphotransferase Human genes 0.000 description 1
- 239000004476 plant protection product Substances 0.000 description 1
- 239000013600 plasmid vector Substances 0.000 description 1
- 239000011505 plaster Substances 0.000 description 1
- 231100000614 poison Toxicity 0.000 description 1
- 229920002959 polymer blend Polymers 0.000 description 1
- 229920006264 polyurethane film Polymers 0.000 description 1
- 239000011496 polyurethane foam Substances 0.000 description 1
- 239000011178 precast concrete Substances 0.000 description 1
- 238000002203 pretreatment Methods 0.000 description 1
- 230000001603 reducing effect Effects 0.000 description 1
- 230000008929 regeneration Effects 0.000 description 1
- 238000011069 regeneration method Methods 0.000 description 1
- 230000008844 regulatory mechanism Effects 0.000 description 1
- 230000008439 repair process Effects 0.000 description 1
- 230000010076 replication Effects 0.000 description 1
- 230000002441 reversible effect Effects 0.000 description 1
- 238000012552 review Methods 0.000 description 1
- 229960004889 salicylic acid Drugs 0.000 description 1
- 150000003839 salts Chemical class 0.000 description 1
- 238000004062 sedimentation Methods 0.000 description 1
- 238000009958 sewing Methods 0.000 description 1
- 230000000392 somatic effect Effects 0.000 description 1
- 230000006641 stabilisation Effects 0.000 description 1
- 238000011105 stabilization Methods 0.000 description 1
- 239000003381 stabilizer Substances 0.000 description 1
- 239000007858 starting material Substances 0.000 description 1
- 230000001954 sterilising effect Effects 0.000 description 1
- 238000004659 sterilization and disinfection Methods 0.000 description 1
- 238000003860 storage Methods 0.000 description 1
- 238000005728 strengthening Methods 0.000 description 1
- 239000005720 sucrose Substances 0.000 description 1
- 238000004381 surface treatment Methods 0.000 description 1
- 239000000725 suspension Substances 0.000 description 1
- 230000002194 synthesizing effect Effects 0.000 description 1
- 238000010189 synthetic method Methods 0.000 description 1
- 229920003002 synthetic resin Polymers 0.000 description 1
- 239000000057 synthetic resin Substances 0.000 description 1
- 239000000454 talc Substances 0.000 description 1
- 229910052623 talc Inorganic materials 0.000 description 1
- 239000012815 thermoplastic material Substances 0.000 description 1
- 239000002562 thickening agent Substances 0.000 description 1
- 239000000606 toothpaste Substances 0.000 description 1
- 229940034610 toothpaste Drugs 0.000 description 1
- 239000003440 toxic substance Substances 0.000 description 1
- 238000000844 transformation Methods 0.000 description 1
- 241001515965 unidentified phage Species 0.000 description 1
- 244000045561 useful plants Species 0.000 description 1
- 238000004073 vulcanization Methods 0.000 description 1
- 239000012991 xanthate Substances 0.000 description 1
Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12P—FERMENTATION OR ENZYME-USING PROCESSES TO SYNTHESISE A DESIRED CHEMICAL COMPOUND OR COMPOSITION OR TO SEPARATE OPTICAL ISOMERS FROM A RACEMIC MIXTURE
- C12P19/00—Preparation of compounds containing saccharide radicals
- C12P19/04—Polysaccharides, i.e. compounds containing more than five saccharide radicals attached to each other by glycosidic bonds
-
- A—HUMAN NECESSITIES
- A21—BAKING; EDIBLE DOUGHS
- A21D—TREATMENT OF FLOUR OR DOUGH FOR BAKING, e.g. BY ADDITION OF MATERIALS; BAKING; BAKERY PRODUCTS
- A21D2/00—Treatment of flour or dough by adding materials thereto before or during baking
- A21D2/08—Treatment of flour or dough by adding materials thereto before or during baking by adding organic substances
- A21D2/14—Organic oxygen compounds
- A21D2/18—Carbohydrates
- A21D2/186—Starches; Derivatives thereof
-
- A—HUMAN NECESSITIES
- A23—FOODS OR FOODSTUFFS; TREATMENT THEREOF, NOT COVERED BY OTHER CLASSES
- A23L—FOODS, FOODSTUFFS OR NON-ALCOHOLIC BEVERAGES, NOT OTHERWISE PROVIDED FOR; PREPARATION OR TREATMENT THEREOF
- A23L29/00—Foods or foodstuffs containing additives; Preparation or treatment thereof
- A23L29/20—Foods or foodstuffs containing additives; Preparation or treatment thereof containing gelling or thickening agents
- A23L29/206—Foods or foodstuffs containing additives; Preparation or treatment thereof containing gelling or thickening agents of vegetable origin
- A23L29/212—Starch; Modified starch; Starch derivatives, e.g. esters or ethers
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/82—Vectors or expression systems specially adapted for eukaryotic hosts for plant cells, e.g. plant artificial chromosomes (PACs)
- C12N15/8241—Phenotypically and genetically modified plants via recombinant DNA technology
- C12N15/8242—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits
- C12N15/8243—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits involving biosynthetic or metabolic pathways, i.e. metabolic engineering, e.g. nicotine, caffeine
- C12N15/8245—Phenotypically and genetically modified plants via recombinant DNA technology with non-agronomic quality (output) traits, e.g. for industrial processing; Value added, non-agronomic traits involving biosynthetic or metabolic pathways, i.e. metabolic engineering, e.g. nicotine, caffeine involving modified carbohydrate or sugar alcohol metabolism, e.g. starch biosynthesis
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/10—Transferases (2.)
- C12N9/1048—Glycosyltransferases (2.4)
- C12N9/1051—Hexosyltransferases (2.4.1)
Landscapes
- Life Sciences & Earth Sciences (AREA)
- Health & Medical Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Engineering & Computer Science (AREA)
- Genetics & Genomics (AREA)
- Organic Chemistry (AREA)
- Zoology (AREA)
- Wood Science & Technology (AREA)
- Molecular Biology (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Biotechnology (AREA)
- General Engineering & Computer Science (AREA)
- Biomedical Technology (AREA)
- General Health & Medical Sciences (AREA)
- Microbiology (AREA)
- Nutrition Science (AREA)
- Biochemistry (AREA)
- Food Science & Technology (AREA)
- Medicinal Chemistry (AREA)
- Polymers & Plastics (AREA)
- Dispersion Chemistry (AREA)
- Cell Biology (AREA)
- Physics & Mathematics (AREA)
- Biophysics (AREA)
- Plant Pathology (AREA)
- Chemical Kinetics & Catalysis (AREA)
- General Chemical & Material Sciences (AREA)
- Breeding Of Plants And Reproduction By Means Of Culturing (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Polysaccharides And Polysaccharide Derivatives (AREA)
- Enzymes And Modification Thereof (AREA)
- Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)
- Bakery Products And Manufacturing Methods Therefor (AREA)
- Noodles (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Cosmetics (AREA)
- Grain Derivatives (AREA)
Description
- Die vorliegende Erfindung beschreibt Nucleinsäuremoleküle, die Enzyme aus Weizen codieren, welche an der Stärkesynthese von Pflanzen beteiligt sind. Diese Enzyme sind Isotypen der Stärkesynthase.
- Die Erfindung beschreibt weiterhin Vektoren und Bakterien, die diese Nucleinsäuremoleküle enthalten. Die vorliegende Erfindung betrifft Weizenpflanzenzellen und mit den beschriebenen Nucleinsäuremolekülen transformierte Weizenpflanzen, bei denen die Aktivität der codierten Stärkesynthase reduziert ist.
- Weiterhin werden Verfahren für die Produktion von transgenen Weizenpflanzen beschrieben, die wegen der Integration von DNA-Molekülen, die Stärkesynthase von Weizen codieren, Stärke synthetisieren, die in ihren Eigenschaften modifiziert ist.
- Hinsichtlich ihrer wachsenden Bedeutung, die kürzlich pflanzlichen Substanzen als regenerativen Quellen von Rohstoffen zugeschrieben wurde, ist es eine Aufgabe der biotechnologischen Forschung zu versuchen, das pflanzliche Rohmaterial den Bedürfnissen der verarbeitenden Industrie anzupassen. Um die Verwendung von modifizierten, regenerativen Rohstoffen in so vielen Gebieten wie möglich zu ermöglichen, ist es weiterhin wichtig, eine große Vielzahl von Substanzen zu erhalten. Neben Ölen, Fetten und Proteinen stellen Polysaccharide den wesentlichen regenerativen Rohstoff dar, der von Pflanzen abgeleitet ist. Neben Cellulose nimmt Stärke eine wichtige Position unter den Polysacchariden ein, da sie eine der wichtigsten Speichersubstanzen in höheren Pflanzen ist. Unter ihnen ist Weizen eine interessante Kulturpflanze, da er 20% der Gesamtmenge an Stärke erzeugt, die in der Europäischen Gemeinschaft produziert wird.
- Das Polysaccharid Stärke ist ein Polymer, das aus chemisch homogenen Grundkomponenten aufgebaut ist, nämlich den Glucosemolekülen. Sie stellt jedoch ein hoch komplexes Gemisch von verschiedenen Typen von Molekülen dar, die sich untereinander hinsichtlich ihres Polymerisationsgrads und des Verzweigungsgrads der Glucoseketten unterscheiden. Deshalb ist Stärke nicht ein homogener Rohstoff. Man unterscheidet insbesondere zwischen Amylose-Stärke, einem grundsätzlich nicht verzweigten Polymer, das aus α-1,4-glycosidisch verzweigten Glucosemolekülen aufgebaut ist, und Amylopectin-Stärke, die wiederum ein komplexes Gemisch aus verschiedenen, verzweigten Glucoseketten ist. Die Verzweigung ist das Resultat von zusätzlichen α-1,6-glycosidischen Verknüpfungen. Bei Weizen besteht die synthetisierte Stärke in Abhängigkeit von der Sorte aus etwa 11–37% Amylose-Stärke.
- Um eine weitestmögliche Verwendung von Stärke zu ermöglichen, scheint es wünschenswert, daß Pflanzen bereitgestellt werden, die in der Lage sind, modifizierte Stärke zu synthetisieren, die für die verschiedenen Verwendungen besonders geeignet ist. Die Züchtung ist eine Möglichkeit, solche Pflanzen bereitzustellen. Dies stellt sich jedoch im Falle des Weizen wegen der polyploiden Eigenschaften von kultiviertem Weizen (tetra- und hexaploid) als sehr schwierig heraus. Erst kürzlich gelang es Wissenschaftlern "wächsernen" (keine Amylose enthaltenden) Weizen durch Kreuzzüchtung von Mutanten, die in der Natur vorkommen, zu produzieren (Nakamura et al., Mol. Gen. Genet. 248 (1995), 253–259). Eine andere Möglichkeit ist die spezifische genetische Modifikation des Stärkemetabolismus von Stärke produzierenden Pflanzen mittels rekombinanter DNA-Techniken. Eine Vorraussetzung dafür ist allerdings die Identifikation und Charakterisierung der Enzyme, die in die Stärkesynthese und/oder Stärkemodifikation involviert sind, ebenso wie die Isolierung der entsprechenden DNA-Moleküle, die diese Enzyme codieren.
- Die biochemischen Reaktionswege, die zur Produktion von Stärke führen, sind grundsätzlich bekannt. Die Stärkesynthese in Pflanzenzellen findet in den Plastiden statt. In photosynthetisch aktivem Gewebe sind dies die Chloroplasten, in photosynthetische inaktivem, Stärke speicherndem Gewebe die Amyloplasten.
- Die wichtigsten Enzyme, die in die Stärkesynthese involviert sind, sind die Stärkesynthasen ebenso wie Branching Enzymes. Im Falle der Stärkesynthasen werden verschiedene Isotypen beschrieben, die alle durch Übertragung eines Glucosylrests von ADP-Glucose auf α-1,4-Glucane eine Polymerisationsreaktion katalysieren. Branching Enzymes katalysieren die Einführung von α-1,6-Verzweigungen in lineare α-1,4-Glucane.
- Die Stärkesynthasen können in zwei Gruppen aufgeteilt werden: die an Granula gebundenen Stärkesynthasen (GBSS) und die löslichen Stärkesynthasen (SSS). Diese Unterscheidung ist nicht immer offensichtlich, da einige Stärkesynthasen an Granula gebunden und auch löslich sind (Denyer et al., Plant J. 4 (1993), 191–198; Mu et al., Plant J. 6 (1994), 151–159). Innerhalb dieser Klassifikationen sind verschiedene Isotypen für verschiedene Pflanzenarten beschrieben. Diese Isotypen unterscheiden sich untereinander hinsichtlich ihrer Abhängigkeit von Primer-Molekülen (sog. "Primer-abhängige" (Typ II)- und "Primer-unabhängige" (Typ I)-Stärkesynthasen).
- Bis jetzt wurde nur im Falle des Isotyps GBSS I ihre exakte Funktion während der Stärkesynthese erfolgreich bestimmt. Pflanzen, bei denen diese Enzymaktivität stark oder vollständig reduziert wurde, synthetisieren Stärke, die frei von Amylose ist (eine sog. "wächserne"-Stärke) (Shure et al., Cell 35 (1983), 225–233; Visser et al., Mol. Gen. Genet. 225 (1991), 289–296 ; WO 92/11376); deshalb wurde diesem Enzym eine entscheidende Rolle bei der Synthese von Amylose-Stärke zugewiesen. Dieses Phänomen wird auch in den Zellen der Grünalge Chlamydomonas reinhardtii beobachtet (Delrue et al., J. Bacteriol. 174 (1992), 3612–3620). Im Falle von Chlamydomonas wurde weiterhin gezeigt, daß GBSS I nicht nur in die Synthese von Amylose involviert ist, sondern auch auf die Synthese von Amylopectin einen Einfluß hat. Bei Mutanten, die keinerlei GBSS I-Aktivität zeigen, fehlt eine gewisse Fraktion des normalerweise synthetisierten Amylopectins, die langkettige Glucane zeigt.
- Die Funktionen der anderen Isotypen der an Granula gebundenen Stärkesynthasen, insbesondere GBSS II, und der löslichen Stärkesynthasen sind bis jetzt nicht klar. Man nimmt an, daß lösliche Stärkesynthasen, zusammen mit Verzweigungsenzymen, in die Synthese von Amylopectin involviert sind (vgl. z.B. Ponstein et al., Plant Physiol. 92 (1990), 234–241) und daß sie bei der Regulierung der Stärkesyntheserate eine wichtige Rolle spielen.
- Im Falle von Weizen wurden auf der Ebene der Proteine mindestens zwei Isotypen von an Granula gebundener Stärkesynthase (60 kDa und 100–105 kDa) und ein weiterer Isotyp, der möglicherweise eine lösliche Stärkesynthase darstellt (Denyer et al., Planta 196 (1995), 256–265; Rahman et al., Aust. J. Plant. Physiol. 22 (1995), 793–803), identifiziert. Die Existenz von mehreren SSS-Isotypen wurde bereits mittels chromatographischer Verfahren bewiesen (Rijven, Plant Physiol. 81 (1986) 448–453). Eine cDNA, die GBSS I aus Weizen codiert, wurde bereits beschrieben (Ainsworth et al., Plant Mol. Biol. 22 (1993), 67–82).
- Nucleinsäuresequenzen, die weitere Isotypen von Stärkesynthase aus Weizen codieren, sind noch unbekannt.
- cDNA-Sequenzen, die andere Stärkesynthasen als GBSS I codieren, wurden bis jetzt nur aus Erbse (Dry et al., Plant J. 2 (1992), 193–202), Reis (Baba et al., Plant Physiol. 103 (1993) 565–573) und Kartoffeln (Edwards et al., Plant J. 8 (1995), 283–294) beschrieben.
- Lösliche Stärkesynthasen wurden in mehreren anderen Pflanzenarten neben Weizen identifiziert. Lösliche Stärkesynthasen wurden zum Beispiel in homogener Form aus der Erbse (Denyer und Smith, Planta 186 (1992) 609–617) und Kartoffeln (Edwards et al., Plant J. 8 (1995), 283–294) isoliert. In diesen Fällen wurde gefunden, daß der Isotyp der löslichen Stärkesynthase, der als SSS II identifiziert wurde, identisch ist mit der an Granula gebundenen Stärkesynthase GBSS II (Denyer et al., Plant J. 4 (1993), 191–198; Edwards et al., Plant J. 8 (1995), 283–294). Im Falle anderer Pflanzenarten wurde die Existenz von mehreren SSS-Isotypen mittels chromatographischer Verfahren beschrieben, wie zum Beispiel im Falle von Gerste (Tyynelã und Schulman, Physiologia Plantarum 89 (1993) 835–841; Kreis, Planta 148 (1980), 412–416). Es wurden aber bis jetzt keine DNA-Sequenzen beschrieben, die diese Proteine codieren.
- Die WO 96/15248 beschreibt Nucleotidsequenzen, die aus Kartoffel isoliert wurden und die verschiedene Arten von löslicher Stärkesynthase (als SSSA und SSSB bezeichnet) und GBSS II codieren.
- Um weitere Möglichkeiten der Modifikation jeder gewünschten, Stärke speichernden Pflanze, insbesondere Weizen, auf eine solche Weise bereitzustellen, daß sie eine modifizierte Stärke synthetisiert, müssen die entsprechenden DNA-Sequenzen, die weitere Isotypen von Stärkesynthasen codieren, identifiziert werden.
- Deshalb war die Aufgabe der vorliegenden Erfindung die Bereitstellung von Nucleinsäuremolekülen, die Enzyme codieren – insbesondere Enzyme aus Weizen -, die in die Stärkebiosynthese involviert sind, und mit deren Hilfe genetisch modifizierte Pflanzen produziert werden können, die eine reduzierte Aktivität dieser Enzyme zeigen, wodurch eine Modifikation der chemischen und/oder physikalischen Eigenschaften der in diesen Pflanzen synthetisierten Stärke bewirkt wird.
- Diese Aufgabe wurde durch die Bereitstellung der Ausführungsformen erreicht, die in den Ansprüchen beschrieben sind.
- Die vorliegende Erfindung offenbart Nucleinsäuremoleküle, die Proteine von Weizen mit der biologischen Aktivität einer löslichen Stärkesynthase codieren, wobei solche Moleküle vorzugsweise Proteine codieren, die die Aminosäuresequenz umfassen, die unter der Seq ID No. 2 dargestellt ist. Offenbart werden insbesondere Nucleinsäuremoleküle, die die gesamte oder einen Teil der Nucleotidsequenz umfassen, wie sie in Seq ID No. 1 erwähnt ist, vorzugsweise Moleküle, die die codierende Region, wie sie in Seq ID No. 1 angezeigt ist, oder je nachdem die entsprechenden Ribonucleotidsequenzen umfassen.
- Die vorliegende Erfindung beschreibt weiterhin Nucleinsäuremoleküle, die lösliche Stärkesynthase aus Weizen codieren, die mit einem der vorstehend erwähnten Moleküle hybridisieren und die mehr als 90% Sequenzidentität mit der Nucleotidsequenz der Nucleotide 186 bis 2239 von Seq ID No. 1 zeigen.
- Nucleinsäuremoleküle, die lösliche Stärkesynthase aus Weizen codieren und deren Sequenz wegen der Degenerierung des genetischen Codes unterschiedlich ist zu der Nucleotidsequenz der vorstehend erwähnten Moleküle, werden ebenfalls beschrieben.
- Die vorliegenden Erfindung beschreibt auch Nucleinsäuremoleküle, die eine Sequenz zeigen, die zu der gesamten oder einem Teil der vorstehend erwähnten Sequenzen komplementär ist.
- Die Proteine, die von den vorstehend beschriebenen Nucleinsäuremolekülen codiert werden, sind lösliche Stärkesynthasen, die von Weizen abgeleitet sind. Diese Proteine zeigen gewisse homologe Regionen mit den bisher bekannten löslichen Stärkesynthasen von anderen Pflanzenarten.
- Die beschriebenen Nucleinsäuremoleküle können DNA- ebenso wie RNA-Moleküle sein. Die entsprechenden DNA-Moleküle sind zum Beispiel genomische oder cDNA-Moleküle. Die Nucleinsäuremoleküle können aus natürlichen Quellen isoliert werden oder mittels bekannter Verfahren synthetisiert werden.
- In dieser Erfindung bedeutet der Ausdruck "Hybridisierung" eine Hybridisierung unter herkömmlichen Hybridisierungsbedingungen, vorzugsweise unter stringenten Bedingungen, wie zum Beispiel beschrieben in Sambrook et al., Molecular Cloning, A Laboratory Manual, 2te Auflage (1989) Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY).
- Die Nucleinsäuremoleküle, die mit den vorstehend beschriebenen Molekülen hybridisieren, können z.B. aus genomischen oder aus cDNA-Bibliotheken isoliert werden, die aus Weizengewebe produziert wurden.
- Somit können die Identifizierung und Isolierung solcher Nucleinsäuremoleküle unter Verwendung der vorstehend beschriebenen Moleküle oder von Teilen dieser Moleküle oder je nachdem der reversen komplementären Stränge dieser Moleküle z.B. durch Hybridisierung gemäß Standardverfahren stattfinden (vgl. z.B. Sambrook et al., 1989, Molecular Cloning, A Laboratory Manual, 2te Auflage Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY).
- Als Sonde bei der Hybridisierung können z.B. Nucleinsäuremoleküle verwendet werden, die exakt oder im Wesentlichen die Nucleotidsequenzen enthalten, die unter Seq ID No. 1 dargestellt sind, oder Teile davon. Die Fragmente, die als Sonde bei der Hybridisierung verwendet werden, können auch synthetische Fragmente sein, die mittels herkömmlicher Syntheseverfahren produziert wurden und deren Sequenz grundsätzlich identisch ist mit der der Nucleinsäuremoleküle, wie sie vorstehend beschrieben wurden. Nach der Identifizierung und Isolierung der Gene, die mit den vorstehend beschriebenen Nucleinsäuresequenzen hybridisieren, muß die Sequenz bestimmt werden und die Eigenschaften der Proteine, die durch diese Sequenzen codiert werden, müssen analysiert werden.
- Die Moleküle, die mit vorstehend beschriebenen Nucleinsäuremolekülen hybridisieren, umfassen auch Fragmente, Derivate und allelische Varianten der vorstehend beschriebenen Nucleinsäuremoleküle, die ein Protein aus Weizen codieren, wie in der Erfindung beschrieben. Dabei werden Fragmente als Teile der Nucleinsäuremoleküle definiert, die lang genug sind, um eines der beschriebenen Proteine zu codieren. Dies umfaßt auch Teile der vorstehend beschriebenen Nucleinsäuremoleküle, denen die Nucleotidsequenz fehlt, die das Signalpeptid codiert, das für den Transport des Proteins in das Plastid verantwortlich ist. Solche Fragmente sind zum Beispiel die Nucleotidsequenz, die die Aminosäurereste 34 bis 671 codiert, wie in Seq ID No. 2 gezeigt.
- Darüber hinaus sind Fragmente, die bei der vorliegenden Erfindung besonders bevorzugt sind, die Fragmente, die die Nucleotide 186 bis 2239 der Seq ID No. 1 umfassen, ebenso wie die Fragmente, die einen zusätzlichen G-Rest an ihrem 5'-Ende umfassen.
- In diesem Kontext bedeutet der Ausdruck Derivate, daß die Sequenzen dieser Moleküle sich von den Sequenzen der vorstehend erwähnten Nucleinsäuremoleküle an einer oder mehreren Positionen unterscheiden und daß sie ein hohes Maß an Homologie mit diesen Sequenzen zeigen. Dabei bedeutet Homologie eine Sequenzidentität von mehr als 90%. Die Abweichungen, die im Vergleich mit den vorstehend beschriebenen Nucleinsäuremolekülen auftreten, können durch Deletion, Substitution, Insertion oder Rekombination verursacht sein.
- Darüber hinaus bedeutet Homologie, daß zwischen den entsprechenden Nucleinsäuremolekülen oder den Proteinen, die sie codieren, funktionelle und/oder strukturelle Äquivalenz bestehen. Die Nucleinsäuremoleküle, die zu den vorstehend beschriebenen Molekülen homolog sind und Derivate diese Moleküle darstellen, sind im allgemeinen Variationen dieser Moleküle, die Modifikationen darstellen, die dieselbe biologische Funktion ergeben. Diese Variationen können natürlicherweise vorkommende Variationen sein, zum Beispiel Sequenzen, die aus anderen Organismen abgeleitet sind, oder Mutationen, wobei diese Mutationen natürlicherweise aufgetreten sein können oder mittels spezifischer Mutagenese eingeführt werden können. Darüber hinaus können die Variationen synthetisch produzierte Sequenzen sein. Die allelischen Varianten können natürlicherweise vorkommend sein ebenso wie synthetisch produzierte Varianten oder Varianten, die mittels rekombinanter DNA-Techniken produziert wurden.
- Die Proteine, die durch die verschiedenen Varianten der vorstehend beschriebenen Nucleinsäuremoleküle codiert werden, zeigen gewisse gemeinsame Charakteristika. Die Enzymaktivität, das Molekulargewicht, die immunologische Reaktivität, die Konformation usw. können zu diesen Charakteristika gehören, ebenso wie physikalische Eigenschaften wie die Mobilität bei der Gelelektrophorese, chromatographische Charakteristika, Sedimentationskoeffizienten, die Löslichkeit, spektroskopische Eigenschaften, die Stabilität, das pH-Optimum, das Temperaturoptimum usw.. Signifikante Charakteristika einer Stärkesynthase sind: i) ihre Lage im Stroma der Plastiden von Pflanzenzellen; ii) ihre Fähigkeit zur Synthese von linearen α-1,4-verknüpften Polyglucanen unter Verwendung von ADP-Glucose als Substrat. Diese Aktivität kann so bestimmt werden, wie es bei Denyer und Smith (Planta, 186 (1992), 606–617) gezeigt oder in den Beispielen beschrieben wird.
- Darüber hinaus beschreibt die Erfindung Vektoren, insbesondere Plasmide, Cosmide, Viren, Bakteriophagen und andere Vektoren, die in der Gentechnik gebräuchlich sind und die die vorstehend erwähnten Nucleinsäuremoleküle enthalten.
- Bei einer bevorzugten Ausführungsform sind die in den Vektoren enthaltenen Nucleinsäuremoleküle mit regulatorischen Elementen verknüpft, die die Transkription und Synthese einer translatierbaren RNA in prokaryontischen und eukaryontischen Zellen sicherstellen.
- Die Expression der vorstehend beschriebenen Nucleinsäuremoleküle in prokaryontischen Zellen, z.B. in Escherichia coli, ist insofern interessant, als dies eine präzisere Charakterisierung der enzymatischen Aktivitäten der Enzyme ermöglicht, die durch diese Moleküle codiert werden. Insbesondere ist es möglich, das Produkt zu charakterisieren, das von den jeweiligen Enzymen in Abwesenheit von anderen Enzymen synthetisiert wird, die in die Stärkesynthese der Pflanzenzelle involviert sind. Dies macht es möglich, Rückschlüsse über die Funktion zu ziehen, die das jeweilige Protein während der Stärkesynthese in der Pflanzenzelle ausübt.
- Darüber hinaus ist es möglich, mittels herkömmlicher molekularbiologischer Techniken (vgl. z.B. Sambrook et al., 1989, Molecular Cloning, A Laboratory Manual, 2te Auflage, Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY) verschiedene Mutationen in die beschriebenen Nucleinsäuremoleküle einzuführen, womit die Synthese von Proteinen mit möglicherweise modifizierten biologischen Eigenschaften induziert wird. Damit ist es einerseits möglich, Deletionsmutanten zu produzieren, bei denen Nucleinsäuremoleküle durch fortlaufende Deletionen am 5'- oder 3'-Ende der codierenden DNA-Sequenz produziert werden. Diese Nucleinsäuremoleküle können zur Synthese von entsprechend verkürzten Proteinen führen. Solche Deletionen am 5'-Ende der Nucleotidsequenz machen es zum Beispiel möglich, die Aminosäuresequenzen zu identifizieren, die für den Transport des Enzyms in die Plastiden verantwortlich sind (Transitpeptide). Dies erlaubt die spezifische Produktion von Enzymen, die wegen der Entfernung der entsprechenden Sequenzen nicht mehr in den Plastiden lokalisiert sind, sondern im Cytosol, oder die wegen der Hinzufügung von anderen Signalsequenzen in anderen Kompartimenten lokalisiert sind.
- Andererseits könnten auch Punktmutationen an Positionen eingeführt werden, wo eine Modifikation der Aminosäuresequenz zum Beispiel die Enzymaktivität oder die Regulation des Enzyms beeinflußt. Auf diesem Weg können zum Beispiel Mutanten mit einem modifizierten Km-Wert produziert werden, oder Mutanten, die nicht mehr den Regulationsmechanismen durch allosterische Regulation oder der kovalenten Modifikation unterliegen, die üblicherweise in Zellen auftreten.
- Darüber hinaus können Mutanten, die eine modifizierte Substrat- oder Produktspezifität zeigen, produziert werden, wie Mutanten, die ADP-Glucose-6-Phosphat statt ADP-Glucose als Substrat verwenden. Darüber hinaus können Mutanten mit einem modifizierten Aktivitäts-Temperatur-Profil produziert werden.
- Für die genetische Manipulation in prokaryontischen Zellen können die vorstehend beschriebenen Nucleinsäuremoleküle oder Teile dieser Moleküle in Plasmide integriert werden, die eine Mutagenese oder eine Sequenzmodifikation durch Rekombination von DNA-Sequenzen erlauben. Mittels Standardverfahren (vgl. Sambrook et al., 1989, Molecular Cloning: A laboratory manual, 2te Auflage, Cold Spring Harbor Laboratory Press, NY, USA) können Basenaustäusche durchgeführt oder natürliche oder synthetische Sequenzen hinzugefügt werden. Um die DNA-Fragmente zu verbinden, können Adaptoren oder Linker an die Fragmente gebunden werden. Darüber hinaus können Manipulationen verwendet werden, die geeignete Restriktionsstellen bereitstellen oder die überflüssige DNA oder Restriktionsstellen entfernen. Wo auch immer Inseriertionen, Deletionen oder Substitutionen verwendet werden, kann die in vitro-Mutagenese, die "Primerreparatur", die Restriktion oder die Ligierung verwendet werden. Für die Analyse werden üblicherweise die Sequenzanalyse, eine Restriktionanalyse und weitere biochemische-molekularbiologische Verfahren verwendet.
- Die Erfindung beschreibt auch Wirtszellen, insbesondere prokaryontische oder eukaryontische Zellen, die mit einem vorstehend erwähnten Nucleinsäuremolekül oder mit einem vorstehend beschriebenen Vektor transformiert und/oder genetisch modifiziert wurden, ebenso wie Zellen, die von Zellen abgeleitet wurden, die auf eine solche Weise transformiert und/oder genetisch modifiziert wurden und ein Nucleinsäuremolekül oder einen Vektor, wie vorstehend beschrieben, enthalten. Dies ist vorzugsweise eine Bakterienzelle oder eine Pflanzenzelle. Solche Zellen sind dadurch charakterisiert, daß das vorstehend beschriebene eingebrachte Nucleinsäuremolekül bezüglich der transformierten Zelle heterolog ist, d.h. es kommt in diesen Zellen nicht natürlicherweise vor, oder es ist im Genom an einem anderen Platz als die entsprechende, natürlicherweise vorkommende Sequenz lokalisiert. Darüber hinaus beschreibt die vorliegenden Erfindung die Proteine, die die vorstehend beschriebenen Nucleinsäuremoleküle codieren, ebenso wie Verfahren für ihre Produktion, wobei eine vorstehend beschriebene Wirtszelle unter Bedingungen gezüchtet wird, die die Synthese des Proteins erlauben, und wobei das Protein dann aus den gezüchteten Zellen und/oder dem Kulturmedium isoliert wird.
- Die vorliegenden Erfindung beschreibt auch transgene Pflanzenzellen, die mit einem oder mehreren der vorstehend beschriebenen Nucleinsäuremoleküle transformiert wurden. Solche Zellen enthalten ein oder mehrere Nucleinsäuremoleküle, wobei dieses/diese vorzugsweise mit regulatorischen DNA-Elementen verknüpft ist/sind, die die Transkription in Pflanzenzellen sicherstellen, insbesondere mit einem Promotor. Solche Zellen unterscheiden sich von natürlicherweise vorkommenden Pflanzenzellen dadurch, daß sie mindestens ein Nucleinsäuremolekül der Erfindung enthalten, das natürlicherweise in solchen Zellen nicht vorkommt, oder dadurch, daß ein solches Molekül an einer Position im Genom der Zelle vorkommt, an der es natürlicherweise nicht vorkommt, d.h. in einer unterschiedlichen genomischen Umgebung.
- Mittels Verfahren, die dem Durchschnittsfachmann auf dem Fachgebiet bekannt sind, können die transgenen Pflanzenzellen zu ganzen Pflanzen regeneriert werden. Somit beschreibt die vorliegenden Erfindung auch Pflanzen, die durch Regenerierung der vorstehend beschriebenen transgenen Pflanzenzellen erhalten wurden, und Pflanzen, welche die vorstehend beschriebenen transgenen Pflanzenzellen enthalten. Die transgenen Pflanzen können im Prinzip Pflanzen jeder gewünschten Art sein, d.h. sie können einkeimblättrige ebenso wie zweikeimblättrige Pflanzen sein. Diese sind vorzugsweise Nutzpflanzen, insbesondere Stärke synthetisierende oder Stärke speichernde Pflanzen wie Getreide (Roggen, Gerste, Hafer, Weizen usw.) Reis, Mais, Erbsen, Cassava oder Kartoffeln.
- Durch Bereitstellung der vorstehend beschriebenen Nucleinsäuremoleküle ist es nun möglich – mittels rekombinanter DNA-Techniken – auf eine Weise spezifisch in den Stärkemetabolismus von Pflanzen einzugreifen, insbesondere Weizenpflanzen, wie sie bisher mittels Züchtung nicht möglich war. Damit kann der Stärkemetabolismus auf eine Weise modifiziert werden, daß eine modifizierte Stärke synthetisiert wird, die im Vergleich mit der Stärke, die in Wildtyppflanzen synthetisiert wird, z.B. hinsichtlich ihrer physikalisch-chemischen Eigenschaften modifiziert ist, insbesondere des Verhältnisses Amylose/Amylopectin, des Ausmaßes an Verzweigung, der durchschnittlichen Kettenlänge, des Phosphatgehalts, des Verhaltens bei der Pastenbildung, der Größe und/oder der Form der Stärkekörnchen. Es besteht die Möglichkeit der Erhöhung der Ausbeute der genetisch modifizierten Pflanzen durch Erhöhung der Aktivität der in der Erfindung beschriebenen Proteine, z.B. durch Überexpression der entsprechenden Nucleinsäuremoleküle oder durch Bereitstellung von Mutanten, die nicht mehr den zellspezifischen Regulationsschemata und/oder verschiedenen Temperaturabhängigkeiten bezüglich ihrer Aktivität unterliegen. Die ökonomische Bedeutung der Möglichkeit der Beeinflussung der Stärkesynthese von Weizen ist offensichtlich, da diese Pflanze beträchtliche Mengen an Stärke produziert.
- Es ist daher möglich, die vorstehend beschriebenen Nucleinsäuremoleküle in Pflanzenzellen zu exprimieren, um die Aktivität der jeweiligen Stärkesynthasen zu erhöhen, oder es ist möglich, sie in Zellen einzubringen, die üblicherweise das besagte Enzym nicht exprimieren. Darüber hinaus können die beschriebenen Nucleinsäuremoleküle mittels Verfahren modifiziert werden, die dem Durchschnittsfachmann auf dem Fachgebiet bekannt sind, um Stärkesynthasen zu produzieren, die nicht mehr den zellspezifischen Regulationsschemata unterliegen oder modifizierte Temperaturabhängigkeiten oder Substrat- bzw. Produktspezifitäten zeigen.
- Bei der Expression der vorstehend beschriebenen Nucleinsäuremoleküle in Pflanzen können die synthetisierten Proteine im Prinzip in jedem gewünschten Kompartiment innerhalb der Pflanzenzelle lokalisiert sein. Um sie innerhalb eines spezifischen Kompartiments zu lokalisieren, muß die Sequenz, die die Lokalisierung in den Plastiden sicherstellt, deletiert werden und die verbleibenden codierenden Regionen müssen gegebenenfalls mit DNA-Sequenzen verknüpft werden, die die Lokalisierung in dem jeweiligen Kompartiment sicherstellt. Solche Sequenzen sind bekannt (vgl. z.B. Braun et al., EMBO J. 11 (1992), 3219–3227; Wolter et al., Proc. Natl. Acad. Sci. USA 85 (1988), 846–850; Sonnewald et al., Plant J. 1 (1991), 95–106).
- Die Erfindung beschreibt auch Vermehrungsmaterial der beschriebenen Pflanzen, d.h. Früchte, Samen, Knollen, Wurzelstöcke, Sämlinge, Schnitte, Calli, Zellkulturen, usw. Die Stärke kann aus den transgenen Pflanzenzellen, den Pflanzen ebenso wie aus dem Vermehrungsmaterial gewonnen werden.
- Wegen der Expression oder je nachdem der zusätzlichen Expression von mindestens einem der vorstehend beschriebenen Nucleinsäuremoleküle synthetisieren die transgenen Pflanzenzellen und Pflanzen, die in der Erfindung beschrieben werden, eine Stärke, die im Vergleich mit der Stärke, die in der Wildtyppflanze synthetisiert wird, modifiziert ist, zum Beispiel hinsichtlich ihrer physikalisch-chemischen Eigenschaften, insbesondere des Verhältnisses Amylose/Amylopectin, des Ausmaßes an Verzweigung, der durchschnittlichen Kettenlänge, des Phosphatgehalts, des Verhaltens bei der Pastenbildung, der Größe und/oder der Form der Stärkekörnchen. Im Vergleich mit Wildtypstärke kann eine solche Stärke insbesondere hinsichtlich ihrer Viskosität und/oder der Gelbildungseigenschaften der Klebstoffe dieser Stärke modifiziert sein.
- Die vorliegenden Erfindung betrifft auch transgene Weizenpflanzenzellen, bei denen die Aktivität eines Proteins reduziert ist, wobei das besagte Protein von einem Nucleinsäuremolekül codiert wird, das eine Stärkesynthase aus Weizen codiert, ausgewählt aus der Gruppe, die besteht aus
- (a) Nucleinsäuremolekülen, die ein Protein codieren, das die Aminosäuresequenz der Reste 62 bis 671, wie in SEQ ID NO: 2 gezeigt, umfaßt;
- (b) Nucleinsäuremolekülen, umfassend die Nucleotidsequenz der Nucleotide 186 bis 2239, wie in SEQ ID NO: 1 gezeigt, oder eine entsprechende Ribonucleotidsequenz;
- (c) Nucleinsäuremolekülen, deren Sequenz eine Sequenzidentität von mehr als 90% zu der Nucleotidsequenz der Nucleotide 186 bis 2239, wie in SEQ ID NO: 1 gezeigt, hat und die eine lösliche Stärkesynthase codieren; und
- (d) Nucleinsäuremolekülen, deren Nucleotidsequenz durch die Degeneration des genetischen Codes von der Sequenz der Nucleinsäuremoleküle, aufgeführt unter (c), abweicht.
- Mit den erwähnten Nucleinsäuremolekülen ist es möglich, Weizenpflanzenzellen und Weizenpflanzen zu produzieren, bei denen die Aktivität eines Proteins, das von einem solchen Nucleinsäuremolekül codiert wird, reduziert ist. Dies führt auch zur Synthese von Stärke mit modifizierten chemischen und/oder physikalischen Eigenschaften im Vergleich mit der Stärke von Wildtyppflanzenzellen. Die Produktion von Weizenpflanzenzellen mit einer reduzierten Aktivität eines Proteins, wie vorstehend beschrieben, kann zum Beispiel durch die Expression von mindestens einer entsprechenden Antisense-RNA, von mindestens einer Sense-RNA zum Erzielen eines Cosuppressions-Effektes oder durch die Expression von mindestens einem entsprechend konstruierten Ribozym, welches spezifisch Transkripte spaltet, die das vorstehend beschriebene Protein codieren, unter Verwendung der vorstehend erwähnten Nucleinsäuremoleküle erreicht werden.
- Um eine Antisense-RNA zu exprimieren, können einerseits DNA-Moleküle verwendet werden, die die vollständige Sequenz umfassen, die ein vorstehend beschriebenes Protein codiert, möglicherweise einschließlich existierender flankierender Sequenzen, ebenso wie DNA-Moleküle, die nur Teile der codierenden Sequenz umfassen, wobei diese Teile lang genug sein müssen, um innerhalb der Zellen einen Antisense-Effekt zu bewirken. Grundsätzlich können Sequenzen mit einer minimalen Länge von 15 bp, vorzugsweise mit einer Länge von 100–500 bp und für eine effiziente Antisense-Inhibierung insbesondere Sequenzen mit einer Länge von mehr als 500 bp verwendet werden. Im Allgemeinen werden DNA-Moleküle verwendet, die kürzer sind als 5000 bp, vorzugsweise Sequenzen mit einer Länge von weniger als 2500 bp.
- Es können auch DNA-Sequenzen verwendet werden, die hoch homolog, aber nicht vollständig identisch mit den Sequenzen der vorstehend beschriebenen DNA-Moleküle sind. Die minimale Homologie sollte mehr als etwa 65% sein. Vorzugsweise sollten Sequenzen mit Homologien zwischen 95 und 100% verwendet werden.
- Das Verfahren für die Reduktion der Aktivität eines vorstehend beschriebenen Proteins in Pflanzenzellen mittels eines Cosuppressions-Effektes ist dem Durchschnittsfachmann auf dem Fachgebiet bekannt und wurde zum Beispiel beschrieben in Jorgensen (Trends Biotechnol. 8 (1990), 340–344), Niebel et al., (Curr. Top. Microbiol. Immunol. 197 (1995), 91–103), Flavell et al., (Curr. Top. Microbiol. Immunol. 197 (1995), 43–46), Palaqui und Vaucheret (Plant. Mol. Biol. 29 (1995), 149–159), Vaucheret et al., (Mol. Gen. Genet. 248 (1995) 311–317), de Borne et al., (Mol. Gen. Genet. 243 (1994) 613–621) und in anderen Quellen.
- Die Expression von entsprechenden Ribozymen zur Reduktion der Aktivität gewisser Enzyme in Zellen ist dem Durchschnittsfachmann auf dem Fachgebiet ebenfalls bekannt und zum Beispiel beschrieben in der EP-B1 0 321 201. Die Expression von Ribozymen in Pflanzenzellen wurde z.B. beschreiben von Feyter et al., (Mol. Gen. Genet. 250 (1996) 329–338).
- Darüber hinaus sind auch Weizenpflanzen, die die vorstehend beschriebenen transgenen Weizenpflanzenzellen der Erfindung enthalten, Gegenstand der vorliegenden Erfindung. Diese können aus den Weizenpflanzenzellen der Erfindung mittels Verfahren, die dem Durchschnittsfachmann auf dem Fachgebiet bekannt sind, zu ganzen Pflanzen regeneriert werden.
- Die Erfindung betrifft auch Vermehrungsmaterial der Weizenpflanzen der Erfindung, insbesondere Samen, Sämlinge, Schnitte, Calli, Zellkulturen usw. Darüber hinaus wird auch die Stärke beschrieben, die von den vorstehend erwähnten transgenen Pflanzenzellen, Pflanzen ebenso wie dem Vermehrungsmaterial abgeleitet ist.
- Wegen der Reduktion der Aktivität eines Proteins, das von einem vorstehend erwähnten Nucleinsäuremolekül codiert wird, synthetisieren die transgenen Weizenpflanzenzellen und Weizenpflanzen der Erfindung eine Stärke, die im Vergleich mit der Stärke, die von Wildtyppflanzen synthetisiert wird, hinsichtlich ihrer physikalisch-chemischen Eigenschaften modifiziert ist, insbesondere des Verhältnisses Amylose/Amylopectin, des Verzweigungsgrads, der durchschnittlichen Kettenlänge, des Phosphatgehalts, des Verhaltens bei der Pastenbildung, der Größe und/oder der Form der Stärkekörnchen. Diese Stärke kann zum Beispiel modifizierte Viskositäten und/oder Gelbildungseigenschaften ihrer Klebstoffe im Vergleich mit Stärke zeigen, die von Wildtyppflanzen abgeleitet ist.
- Die beschriebenen Stärken können gemäß Techniken, die dem Durchschnittsfachmann auf dem Fachgebiet bekannt sind, modifiziert werden; in nicht modifizierter ebenso wie in modifizierter Form sind sie geeignet für die Verwendung bei Lebensmitteln oder für die Verwendung bei nicht-Lebensmitteln.
- Grundsätzlich können die Möglichkeiten der Verwendung von Stärke in zwei größerer Gebiete aufgeteilt werden. Ein Gebiet umfaßt die Hydrolyseprodukte von Stärke, im Wesentlichen Glucose und Glucankomponenten, die durch enzymatische oder chemische Prozesse erhalten werden. Sie können als Ausgangsmaterial für weitere chemische Modifikationen und Prozesse verwendet werden, wie die Fermentation. In diesem Kontext könnte es von Bedeutung sein, daß der Hydrolyseprozeß einfach und billig durchgeführt werden kann. Gegenwärtig wird er im Wesentlichen enzymatisch unter Verwendung von Amyloglucosidase durchgeführt. Es ist denkbar, daß die Kosten durch Verwendung niedriger Mengen an Enzymen für die Hydrolyse wegen Veränderungen bei der Struktur der Stärke reduziert werden könnten, z.B. der Vergrößerung der Oberfläche des Korns, der Verbesserung der Abbaufähigkeit wegen geringerer Verzweigung oder einer sterischen Struktur, die den Zugang der verwendeten Enzyme beschränkt.
- Das andere Gebiet, in dem Stärke wegen ihrer Polymerstruktur als sogenannte native Stärke verwendet wird, kann in zwei weitere Gebiete unterteilt werden:
- 1. Verwendung in Lebensmitteln
- Stärke ist ein klassisches Additiv für verschiedene Lebensmittel, bei denen sie im Wesentlichen dem Zweck der Bindung von wäßrigen Additiven dient und/oder eine erhöhte Viskosität oder eine erhöhte Gelbildung verursacht. Wichtige charakteristische Eigenschaften sind das Fluß- und Sorptionsverhalten, Schwell- und Pastenbildungstemperatur, Viskosität und Verdickungsleistung, Löslichkeit der Stärke, Transparenz und Pastenstruktur, Hitze-, Scher- und Säureresistenz, Tendenz zur Retrogradation, Fähigkeit zur Filmbildung, Resistenz beim Einfrieren/Auftauen, Verdaubarkeit ebenso wie die Fähigkeit zur Komplexbildung mit z.B. anorganischen oder organischen Ionen. Ein bevorzugtes Anwendungsgebiet von nativer Stärke ist das Gebiet der Backwaren und Nudeln.
- 2. Verwendung in nicht-Lebensmitteln
- Das andere größere Gebiet der Verwendung von Stärke ist als ein Adjuvans in verschiedenen Produktionsprozessen oder als ein Additiv in technischen Produkten. Die wichtigsten Gebiete für die Verwendung von Stärke als ein Adjuvans sind zunächst die Papier- und Kartonindustrie. In diesem Gebiet wird die Stärke hauptsächlich für die Retention (dem Zurückhalten von Feststoffen), für Leimfüllstoffe und feine Partikel, als Verfestigungssubstanz und für die Dehydratisierung verwendet. Zusätzlich werden die vorteilhaften Eigenschaften der Stärke hinsichtlich Steifheit, Härte, Klang, Griffigkeit, Glanz, Glätte, Zugfestigkeit ebenso wie der Oberfläche verwendet.
- 2.1 Papier- und Kartonindustrie
- Im Papierproduktionsprozeß kann eine Differenzierung zwischen vier Anwendungsfeldern gemacht werden, nämlich Oberfläche, Beschichtung, Masse und Versprühen.
- Die Erfordernisse für Stärke hinsichtlich der Oberflächenbehandlung sind im Wesentlichen ein hohes Maß an Helligkeit, eine entsprechende Viskosität, eine hohe Viskositätsstabilität, eine gute Filmbildung ebenso wie eine niedrige Staubbildung. Wenn bei der Beschichtung verwendet, spielen der Feststoffgehalt, eine entsprechende Viskosität, eine hohe Fähigkeit zur Bindung ebenso wie eine hohe Farbstoffaffinität eine wichtige Rolle. Als Additiv zu der Masse sind eine rasche, einheitliche, verlustfreie Dispersion, eine hohe mechanische Stabilität und eine vollständige Retention in dem Papierbrei von Wichtigkeit. Wenn die Stärke beim Versprühen verwendet wird, sind auch der entsprechende Feststoffgehalt, die hohe Viskosität ebenso wie die hohe Bindungsfähigkeit wichtig.
- 2.2 Klebstoffindustrie
- Ein wichtiges Anwendungsgebiet ist zum Beispiel in der Klebstoffindustrie, wo die Anwendungsgebiete in vier Gebiete unterteilt werden: die Verwendung als reiner Stärkeklebstoff, die Verwendung in Stärkeklebstoff, der mit Spezialchemikalien hergestellt wird, die Verwendung von Stärke als Additiv zu synthetischen Harzen und Polymerdispersionen ebenso wie die Verwendung von Stärke als Verlängerung für synthetische Klebstoffe. 90% aller Klebstoffe auf Stärkebasis werden bei der Produktion von Wellpappe, Papiersäcken und -tüten, Verbund Materialien für Papier und Aluminium, Kisten und Klebstoff zum Anfeuchten bei Umschlägen, Briefmarken usw. verwendet.
- 2.3 Textil- und Textilpflegeindustrie
- Eine andere Möglichkeit der Verwendung als Adjuvans und Additiv ist bei der Produktion von Textilien und Textilpflegeprodukten. Innerhalb der Textilindustrie kann eine Differenzierung zwischen den folgenden vier Anwendungsgebieten gemacht werden; die Verwendung von Stärke als Appretur, d.h. als Adjuvans für die Glättung und Stärkung des Entkettungsverhaltens für den Schutz gegen Zugkräfte, die beim Weben aktiv sind, ebenso wie zur Erhöhung der Verschleißresistenz während des Webens, als ein Mittel zur Verbesserung des Textils hauptsächlich nach die Qualität verschlechternden Vorbehandlungen wie Bleichen, Färben usw., als Verdickungsmittel bei der Produktion von Farbpasten für das Verhindern der Farbstoffdiffusion und als ein Additiv für Schärmittel für Nähgarne.
- 2.4 Bauindustrie
- Das vierte Anwendungsgebiet von Stärke ist ihre Verwendung als Additiv bei Baumaterialien. Ein Beispiel ist die Produktion von Gipskartonplatten, bei denen die Stärke, zu dem dünnen Pflaster gemischt, mit Wasser pastenförmig wird, an die Oberfläche der Gipsplatte diffundiert und somit die Pappe an die Platte bindet. Andere Anwendungsgebiete ist die Beimischung zu Pflaster und Mineralfasern. In Fertigbeton kann Stärke für das Verlangsamen des Verklebungsprozesses verwendet werden.
- 2.5 Bodenstabilisierung
- Darüber hinaus ist Stärke von Vorteil bei der Produktion von Mitteln für die Bodenstabilisierung, die für den temporären Schutz von Bodenpartikeln vor Wasser bei künstlichen Erdbewegungen verwendet werden. Gemäß des Wissens des Stands der Technik kann man von Kombinationsprodukten, die aus Stärke und Polymeremulsionen bestehen, annehmen, daß sie denselben die Erosion und Verkrustung reduzierenden Effekt haben wie die bisher verwendeten Produkte; sie sind jedoch beträchtlich billiger.
- 2.6 Verwendung von Stärke bei Pflanzenschutzmitteln und Düngemitteln
- Ein anderes Anwendungsgebiet ist die Verwendung von Stärke bei Pflanzenschutzmitteln für die Modifikation der spezifischen Eigenschaften dieser Herstellungen. Zum Beispiel können Stärken für die Verbesserung des Anfeuchtens von Pflanzenschutzmitteln und Düngemitteln verwendet werden, für die dosierte Freisetzung des wirksamen Inhaltsstoffs, für die Umformung von flüssigen, flüchtigen und/oder riechenden aktiven Inhaltsstoffen in mikrokristalline, stabile, deformierbare Substanzen, für die Mischung von inkompatiblen Zusammensetzungen und für die Verlängerung der Dauer des Effekts wegen eines reduzierten Abbaus.
- 2.7 Arzneistoffe, Medizin und Kosmetikindustrie
- Stärke kann auch auf den Gebieten der Arzneistoffe, Medizin und in der Kosmetikindustrie verwendet werden. In der pharmazeutischen Industrie kann die Stärke als Bindemittel für Tabletten oder für die Verdünnung des Bindemittels in Kapseln verwendet werden. Darüber hinaus ist Stärke als Zerfallsmittel für Tabletten geeignet, da sie nach dem Verschlucken Flüssigkeit absorbiert und nach einer kurzen Zeit so stark anschwillt, daß der aktive Inhaltsstoff freigesetzt wird. Aus Qualitätsgründen sind medizinische Fließpuder und Pudermittel weitere Anwendungsgebiete. Auf dem Gebiet der Kosmetika kann die Stärke zum Beispiel als Träger für Puderadditive verwendet werden, wie Duftmittel und Salicylsäure. Ein relativ umfangreiches Gebiet der Verwendung von Stärke ist Zahnpasta.
- 2.8 Stärke als ein Additiv bei Kohle und Briketts
- Die Verwendung von als ein Additiv bei Kohle und Briketts ist ebenfalls denkbar. Durch Zugabe von Stärke kann Kohle in hoher Qualität quantitativ agglomeriert und/oder in Brikettform gebracht werden, womit die frühzeitige Zersetzung der Briketts verhindert wird. Grillkohle enthält zwischen 4 und 6% zugesetzte Stärke, erhitzte Kohle zwischen 0,1 und 0,5%. Darüber hinaus ist die Stärke geeignet als Bindemittel, da ihr Zusatz zu Kohle und Briketts die Emission von toxischen Substanzen beträchtlich reduziert.
- 2.9 Prozessierung von Erz- und Kohleschlamm
- Darüber hinaus kann Stärke als Flockungsmittel bei der Prozessierung von Erz- und Kohleschlamm verwendet werden.
- 2.10 Stärke als Additiv bei der Gießerei
- Ein anderes Anwendungsgebiet ist die Verwendung als Additiv bei der Prozessierung von Materialien beim Gießen. Für verschiedene Gießprozesse werden Kerne verwendet, die aus Sand produziert werden, der mit Bindemitteln gemischt ist. Heutzutage ist das am üblichsten verwendete Bindemittel Bentonit, gemischt mit modifizierten Stärken, zumeist schwellende Stärken.
- Der Zweck der Zugabe von Stärke ist eine erhöhte Flußresistenz ebenso wie verbesserte Bindungsstärke. Darüber hinaus können schwellende Stärken mehr Vorraussetzungen für den Produktionsprozeß erfüllen, wie die Dispersionsfähigkeit in kaltem Wasser, die Rehydratisierbarkeit, die gute Mischfähigkeit in Sand und die hohe Bindefähigkeit für Wasser.
- 2.11 Die Verwendung von Stärke in der Gummiindustrie
- In der Gummiindustrie kann Stärke für die Verbesserung der technischen und optischen Qualität verwendet werden. Gründe dafür sind ein verbesserter Oberflächenglanz, verbesserte Griffigkeit und verbessertes Aussehen. Zu diesem Zweck wird die Stärke vor der kalten Vulkanisierung auf den klebrigen, gummierten Oberflächen der Gummisubstanzen dispergiert. Sie kann auch zur Verbesserung der Bedruckbarkeit von Gummi verwendet werden.
- 2.12 Produktion von Lederersatzstoffen
- Ein anderes Anwendungsgebiet für modifizierte Stärke ist die Produktion von Lederersatzstoffen.
- 2.13 Stärke in synthetischen Polymeren
- Im Plastikmarkt entstehen die folgenden Anwendungsgebiete: die Integration von Produkten, die von Stärke abgeleitet sind, in den Verarbeitungsprozeß (Stärke ist nur ein Füllmittel, es gibt keine direkte Bindung zwischen synthetischem Polymer und Stärke) oder alternativ die Integration von Produkten, die von Stärke abgeleitet sind, in die Produktion von Polymeren (Stärke und Polymer bilden eine stabile Bindung).
- Die Verwendung von Stärke als reines Füllmittel kann nicht mit anderen Substanzen wie Talkum konkurrieren. Die Situation wird anders, wenn die spezifischen Eigenschaften der Stärke wirksam werden und das Eigenschaftsprofil des Endprodukts somit klar verändert wird. Ein Beispiel ist die Verwendung von Stärkeprodukten bei der Prozessierung von thermoplastischen Materialien wie Polyethylen. Dabei werden Stärke und das synthetische Polymer mittels Coexpression in einem Verhältnis von 1:1 kombiniert, um einen 'Master-Ansatz' zu bilden, von dem verschiedene Produkte mittels allgemeiner Techniken unter Verwendung von granuliertem Polyethylen produziert werden. Die Integration von Stärke in Polyethylenfilme kann eine verbesserte Substanzpermeabilität in Hohlkörpern, eine verbesserte Permeabilität für Wasserdampf, ein verbessertes antistatisches Verhalten, ein verbessertes anti-Block-Verhalten ebenso wie eine bessere Bedruckbarkeit mit wäßrigen Farben verursachen.
- Eine andere Möglichkeit ist die Verwendung von Stärke in Polyurethanschäumen. Wegen der Anpassung der Stärkederivate ebenso wie der Optimierung der Verarbeitungstechniken ist es möglich, die Reaktion zwischen synthetischen Polymeren und den Hydroxygruppen der Stärke zu kontrollieren. Das Resultat sind Polyurethanfilme, die wegen der Verwendung von Stärke die folgenden Eigenschaftsprofile haben: einen reduzierten thermischen Ausdehnungskoeffizient, ein vermindertes Schrumpfverhalten, ein verbessertes Druck-/Spannungsverhalten, eine verbesserte Permeabilität für Wasserdampf ohne eine Veränderung bei der Wasseraufnahme, eine reduzierte Entflammbarkeit und Reißdichte, kein Abfallen von brennbaren Teilen, keine Halogenide und reduzierte Alterung. Nachteile, die zur Zeit noch bestehen, sind eine reduzierte Druck- und Stoßstärke.
- Die Produktentwicklung von Filmen ist nicht die einzige Option. Auch feste Plastikprodukte wie Töpfe, Teller und Schüsseln kann mittels eines Stärkegehalts von mehr als 50% produziert werden. Darüber hinaus bieten die Stärke/Polymermischungen den Vorteil, daß sie viel leichter biologisch abbaubar sind.
- Darüber hinaus haben wegen ihrer extremen Fähigkeit zur Bindung von Wasser gepfropfte Stärkepolymere höchste Bedeutung gewonnen. Dies sind Produkte, die ein Rückgrat aus Stärke und ein Seitengitter eines synthetischen Monomers haben, das gemäß dem Prinzip des Radikalkettenmechanismus aufgepfropft wurde. Die heutzutage verfügbaren gepfropften Stärkepolymere sind durch eine verbesserte Bindungs- und Rückhaltefähigkeit von bis zu 1000 g Wasser pro g Stärke und eine hohe Viskosität gekennzeichnet. Diese Superabsorptionsmittel werden hauptsächlich auf dem Gebiet der Hygiene verwendet, z.B. in Produkten wie Windeln und Tücher, ebenso wie im landwirtschaftlichen Sektor, z.B. bei Samenpellets.
- Entscheidend für die Verwendung der neuen, durch rekombinante DNA-Technik modifizierten Stärke sind einerseits die Struktur, der Wassergehalt, der Proteingehalt, der Lipidgehalt, der Fasergehalt, der Asche-/Phosphatgehalt, das Verhältnis Amylose/Amylopectin, die Verteilung der relativen molaren Masse, der Verzweigungsgrad, die Körnchengröße und form ebenso wie die Kristallisation und andererseits Eigenschaften, die zu folgenden Eigenschaften führen: das Fluß- und Sorptionsverhalten, die Pastenbildungstemperatur, die Viskosität, die Verdickungsleistung, die Löslichkeit, die Pastenstruktur, die Transparenz, die Hitze-, Scher- und Säureresistenz, die Tendenz zur Retrogradation, die Fähigkeit zur Gelbildung, die Resistenz beim Einfrieren/Auftauen, die Fähigkeit zur Komplexbildung, die Jodbindung, die Filmbildung, die Adhäsionskraft, die Enzymstabilität, die Verdaubarkeit und die Reaktivität.
- Die Produktion von modifizierter Stärke durch genetische Manipulation einer transgenen Pflanze kann die Eigenschaften der Stärke, die aus der Pflanze gewonnen wird, auf eine solche Weise modifizieren, daß weitere Modifikationen mit chemischen oder physikalischen Verfahren überflüssig werden. Andererseits können Stärken, die mittels rekombinanter DNA-Techniken modifiziert wurden, einer weiteren chemischen Modifikation unterworfen werden, die in einer weiteren Verbesserung der Qualität für gewisse der vorstehend beschriebenen Anwendungsgebiete resultieren wird. Diese chemischen Modifikationen sind im Prinzip dem Durchschnittsfachmann auf dem Fachgebiet bekannt. Dies sind insbesondere Modifikationen mittels
- – Hitzebehandlung
- – Säurebehandlung
- – Oxidation
- – Veresterung,
- – Bildung von Stärkeethern Stärkealkylether, -O-allylether, -Hydroxyalkylether, -O-carboxylmethylether, N-enthaltende Stärkeether, P-enthaltende Stärkeether und S-enthaltende Stärkeether.
- – Bildung von verzweigten Stärken
- – Bildung von gepfropften Stärkepolymeren
- Die beschriebenen Stärken werden bevorzugt bei der Produktion von Verpackungs- und Einwegmaterial verwendet.
- Um die beschriebenen Nucleinsäuremoleküle in der Sense- oder Antisense-Orientierung in Pflanzenzellen zu exprimieren, werden diese mit regulatorischen DNA-Elementen verknüpft, die die Transkription in Pflanzenzellen sicherstellen. Solche regulatorischen DNA-Elementen sind insbesondere Promotoren. Grundsätzlich kann für die Expression jeder Promotor verwendet werden, der in Pflanzenzellen aktiv ist.
- Der Promotor kann auf eine solche Weise ausgesucht werden, daß die Expression konstitutiv oder in einem gewissen Gewebe, zu einem gewissen Zeitpunkt der Entwicklung der Pflanze oder zu einem Zeitpunkt stattfindet, der durch äußere Umstände bestimmt wird. Hinsichtlich der Pflanze kann der Promotor homolog oder heterolog sein. Geeignete Promotoren für die konstitutive Expression sind z.B. der 35S RNA-Promotor des Blumenkohl-Mosaik-Virus und der Ubiquitin-Promotor aus Mais. Für eine knollenspezifische Expression in Kartoffeln kann der Patatingen-Promotor B33 (Rocha-Sosa et al., EMBO J. 8 (1989), 23–29) verwendet werden. Ein Beispiel für einen Promotor, der nur in photosynthetisch aktiven Geweben die Expression sicherstellt, ist der ST-LS1-Promotor (Stockhaus et al., Proc. Natl. Acad. Sci. USA 84 (1987), 7943–7947; (Stockhaus et al., EMBO J. 8 (1989), 2445–2451). Für eine Endosperm-spezifische Expression sind der HMG-Promotor aus Weizen, der USP-Promotor, der Phaseolin-Promotor oder Promotoren von den Zein-Genen aus Mais geeignet. Darüber hinaus kann eine Terminationssequenz existieren, die zur korrekten Beendigung der Transkription und zur Hinzufügung eines Poly-A-Schwanzes zum Transkript dient, von dem man annimmt, daß er die Transkripte stabilisiert. Solche Elemente sind in der Literatur beschrieben (vgl. Gielen et al., EMBO J. 8 (1989), 23–29) und können nach Wunsch ausgetauscht werden.
- Die vorliegenden Erfindung beschreibt Nucleinsäuremoleküle, die eine Stärkesynthase aus Weizen codiert. Dies erlaubt die Identifikation der Funktion dieses Isotyps bei der Stärkebiosynthese ebenso wie die Produktion von genetisch modifizierten Pflanzen, bei denen die Aktivität dieses Enzyms modifiziert ist. Dies ermöglicht die Synthese von Stärke mit einer modifizierten Struktur und daher mit modifizierten physikalisch-chemischen Eigenschaften in den Pflanzen, die auf diese Weise manipuliert wurden.
- Die beschriebenen Nucleinsäuremoleküle können auch zur Produktion von Pflanzen verwendet werden, bei denen die Aktivität der beschriebenen Stärkesynthase erhöht oder reduziert ist und bei denen gleichzeitig die Aktivitäten von anderen Enzymen, die in die Stärkebiosynthese involviert sind, modifiziert sind. Dabei sind alle Arten von Kombinationen und Permutationen denkbar. Durch Modifikation der Aktivität von einem oder mehr Isotypen der Stärkesynthase in Pflanzen wird die Synthese einer Stärke bewirkt, die in ihrer Struktur verändert ist. Durch Erhöhung der Aktivität von einem oder mehreren Isotypen der Stärkesynthase in den Zellen des stärkespeichernden Gewebes von transformierten Pflanzen wie des Endosperms von Mais oder Weizen oder der Kartoffelknolle können erhöhte Ausbeuten das Resultat sein. Zum Beispiel können die beschriebenen Nucleinsäuremoleküle oder die entsprechenden Antisense-Konstrukte in Pflanzenzellen integriert werden, bei denen die Synthese von endogenen GBSS I-, SSS- oder GBSS II-Proteinen schon wegen eines Antisense-Effekts oder eine Mutation inhibiert ist, oder bei denen die Synthese des Branching Enzyme inhibiert ist (wie beschrieben von Nakamura et al. (vorstehend zitiert)).
- Wenn die Inhibierung der Synthese von mehreren Stärkesynthasen in transformierten Pflanzen erreicht werden soll, können DNA-Moleküle für die Transformation verwendet werden, die gleichzeitig mehrere Regionen in der Antisense-Orientierung enthalten, die von einem geeigneten Promotor kontrolliert werden und die die entsprechenden Stärkesynthasen codieren. Dabei kann jede Sequenz von ihrem eigenen Promotor kontrolliert werden oder sonst können die Sequenzen als eine Fusion von einem gemeinsamen Promotor transkribiert werden. Im Allgemeinen wird die letzte Alternative bevorzugt werden, da in diesem Fall die Synthese der entsprechenden Proteine in etwa gleichem Maße inhibiert sein sollte.
- Darüber hinaus ist es möglich, DNA-Moleküle zu konstruieren, die neben DNA-Sequenzen, die Stärkesynthasen codieren, weitere DNA-Sequenzen enthalten, die andere Proteine codieren, die in die Stärkesynthese oder -Modifikation involviert sind. Auch dabei können die Sequenzen wiederum in Serien verknüpft sein und von einem gemeinsamen Promotor transkribiert werden. Hinsichtlich der Länge der einzelnen codierenden Regionen, die in einem solchen Konstrukt verwendet werden, treffen die vorstehend erwähnten Fakten bezüglich der Produktion von Antisense-Konstrukten ebenfalls zu. Es gibt keine Obergrenze hinsichtlich der Zahl von Antisense-Fragmenten, die von einem Promotor in einem solchen DNA-Molekül transkribiert werden. Das resultierende Transkript sollte jedoch nicht länger als 10 kb, vorzugsweise 5 kb, sein.
- Codierende Regionen, die in solchen DNA-Molekülen in Kombination mit anderen codierenden Regionen in der Antisense-Orientierung hinter einem geeigneten Promotor liegen, können von DNA-Sequenzen abgeleitet sein, die die folgenden Proteine codieren: Granula-gebundene Stärkesynthasen (GBSS I und II), andere lösliche Stärkesynthasen, Branching Enzymes, Debranching Enzymes, Disproportionierungsenzyme und Stärkephosphorylasen. Diese Aufzählung dient nur als ein Beispiel. Die Verwendung von anderen DNA-Sequenzen im Rahmen einer solchen Kombination ist auch denkbar.
- Mittels solcher Konstrukte ist es möglich, die Synthese von mehreren Enzymen gleichzeitig innerhalb der Pflanzenzellen zu inhibieren, die mit diesen Molekülen transformiert wurden.
- Darüber hinaus können die Konstrukte in klassische Mutanten integriert werden, denen ein oder mehrere Gene der Stärkebiosynthese fehlen. Diese Defekte können mit den folgenden Proteinen im Zusammenhang stehen: Granula-gebundene (GBSS I und II) und lösliche Stärkesynthasen (SSS I und II), Branching Enzymes (BE I und II), Debranching Enzymes (R-Enzyme), Disproportionierungsenzyme und Stärkephosphorylasen. Diese Aufzählung dient nur als ein Beispiel.
- Mittels einer solchen Strategie ist es weiterhin möglich, die Synthese von mehreren Enzymen gleichzeitig innerhalb der Pflanzenzellen zu inhibieren, die mit diesen Nucleinsäuremolekülen transformiert wurden.
- Um die Integration von fremden Genen in höhere Pflanzen zu bewerkstelligen, stehen eine große Anzahl an Clonierungsvektoren zur Verfügung, die ein Replikationssignal für E. coli und ein Markergen für die Selektion von transformierten Bakterienzellen enthalten. Beispiele für solche Vektoren sind pBR322, die pUC-Serie, die M13mp-Serie, pACYC184 usw.. Die gewünschte Sequenz kann an einer geeigneten Restriktionsstelle in den Vektor integriert werden. Das erhaltene Plasmid wird für die Transformation von E. coli-Zellen verwendet. Die transformierten E. coli-Zellen werden in einem geeigneten Medium gezüchtet und anschließend geerntet und lysiert. Das Plasmid wird gewonnen. Als ein Analyseverfahren für die Charakterisierung der erhaltenen Plasmid-DNA werden im Allgemeinen die Restriktionsanalyse, die Gelelektrophorese und andere biochemische-molekularbiologische Verfahren verwendet. Nach jeder Manipulation kann die Plasmid-DNA gespalten werden und die erhaltenen DNA-Fragmente können mit anderen DNA-Sequenzen verknüpft werden. Jede Plasmid-DNA kann in dasselbe oder in andere Plasmide cloniert werden.
- Um DNA in Pflanzenwirtszellen zu integrieren, steht ein großer Bereich an Techniken zur Verfügung. Diese Techniken umfassen die Transformation von Pflanzenzellen mit T-DNA unter Verwendung von Agrobakterium tumefaciens oder Agrobakterium rhizogenes als Transformationsmedium, die Fusionierung von Protoplasten, die Injektion und die Elektroporation von DNA, die Integration von DNA mittels des biolistischen Verfahrens ebenso wie weitere Möglichkeiten.
- Im Falle der Injektion, des biolistischen Verfahrens und der Elektroporation von DNA in Pflanzenzellen bestehen keine besonderen Erfordernisse hinsichtlich der verwendeten Plasmide. Einfache Plasmide wie pUC-Derivate können verwendet werden. Im Falle, daß ganze Pflanzen aus den auf solche Weise transformierten Zellen regeneriert werden sollen, sollte jedoch ein selektierbares Markergen anwesend sein.
- In Abhängigkeit von dem Verfahren zur Integration der gewünschten Gene in die Pflanzenzelle können weitere DNA-Sequenzen notwendig sein. Wenn z.B. das Ti- oder Ri-Plamid für die Transformation der Pflanzenzelle verwendet wird, sollte üblicherweise mindestens die rechte Grenze, häufiger jedoch die rechte und die linke Grenze der Ti- und Ri-Plasmid-T-DNA mit dem fremdem Gen verbunden sein, um als flankierende Region integriert zu werden.
- Wenn für die Transformation Agrobakterien verwendet werden, sollte die zu integrierende DNA in spezielle Plasmide cloniert werden, nämlich in einen intermediären Vektor oder einen binären Vektor. Wegen Sequenzen, die mit den Sequenzen innerhalb der T-DNA homolog sind, kann der intermediäre Vektor aufgrund der homologen Rekombination in das Ti-Plasmid oder das Ri-Plamid von Agrobakterium integriert werden. Dieses enthält auch die vir-Region, die für den Transfer der T-DNA erforderlich ist. Intermediäre Vektoren können in Agrobakterien nicht replizieren. Mittels eines Helfer-Plasmids kann der intermediäre Vektor in Agrobakterium tumefaciens transferiert werden (Konjugation). Binäre Vektoren können sowohl in E. coli als auch in Agrobakterien replizieren. Sie enthalten ein selektierbares Markergen ebenso wie einen Linker oder Polylinker, der von der rechten und der linken T-DNA-Grenzregion eingerahmt wird. Sie können direkt in Agrobakterien transformiert werden (Holsters et al., Mol, Gen. Genet. 163 (1978), 181–187). Das Agrobakterium, das als Wirtszelle dient, sollte ein Plasmid enthalten, das eine vir-Region trägt. Diese vir-Region ist üblicherweise für den Transfer der T-DNA in die Pflanzenzelle erforderlich. Zusätzliche T-DNA kann anwesend sein. Das auf diese Weise transformierte Agrobakterium wird für die Transformation von Pflanzenzellen verwendet.
- Die Verwendung von T-DNA für die Transformation von Pflanzenzellen wurde intensiv erforscht und ausreichend beschrieben in der
EP 120 516 - Für den Transfer der DNA in die Pflanzenzellen können Pflanzenexplantate in geeigneter Weise mit Agrobakterium tumefaciens oder Agrobakterium rhizogenes gemeinsam gezüchtet werden. Aus dem infizierten Pflanzenmaterial (z.B. Stücke von Blättern, Stammsegmente, Wurzeln, aber auch Protoplasten oder in Suspension gezüchtet Pflanzenzellen) können dann ganze Pflanzen in einem geeigneten Medium regeneriert werden, das für die Selektion von transformierten Zellen Antibiotika oder Biozide enthalten kann. Die auf diese Weise erhaltenen Pflanzen können dann darauf untersucht werden, ob die integrierte DNA vorhanden ist oder nicht. Andere Möglichkeiten für die Integration von fremder DNA unter Verwendung des biolistischen Verfahrens oder durch Transformation von Protoplasten sind dem Durchschnittsfachmann auf dem Fachgebiet bekannt ( vgl. z.B. Willmitzer, L., 1993 Transgenic Plants. In: Biotechnology, A Multi-Volume Comprehensive Treatise (H.J. Rehm, G. Reed, A. Pühler, P. Stadler, Herausgeber), Band 2, 627–659, VCH Weinheim-New York-Basel-Cambridge).
- Alternative Systeme für die Transformation von einkeimblättrigen Pflanzen sind die Transformation mittels des biolistischen Wegs, die elektrisch oder chemisch induzierte DNA-Integration in Protoplasten, die Elektroporation von partiell durchlässig gemachten Zellen, die Makroinjektion von DNA in Blütenstände, die Mikroinjektion von DNA in Mikrosporen und pro-Embryonen, die DNA-Integration durch sprossende Pollen und die DNA-Integration in Embryonen durch Schwellen (ein Überblick wird gegeben in: Potrykus, Physiol. Plant (1990) 269–273).
- Während die Transformation von zweikeimblättrigen Pflanzen mit Ti-Plasmid-Vektorsystemen mittels Agrobakterium tumefaciens eine gut etabliertes Verfahren ist, zeigen neuere Untersuchungen, daß die Transformation mit Vektoren auf der Basis von Agrobakterium auch im Falle von einkeimblättrigen Pflanzen verwendet werden kann (Chan et al., Plant Mol. Biol. 22 (1993) 491–506; Hiei et al., Plant J. 6 (1994), 271–282; Bytebier et al., Proc. Natl. Acad. Sci. USA 84 (1987), 5345–5349; Raineri et al., Bio/Technology 8 (1990), 33–38; Gould et al., Plant Physiol. 95 (1991), 426–434; Mooney et al., Plant, Cell Tiss. & Org. Cult. 25 (1991) 209–218; Li et al., Plant Mol. Biol. 20 (1992), 1037–1048).
- Drei der vorstehend erwähnten Transformationssysteme wurden in der Vergangenheit für verschiedene Arten von Getreide etabliert: die Elektroporation von Pflanzengewebe, die Transformation von Protoplasten und der DNA-Transfer mittels Partikelbombardierung in regeneratives) Gewebe und Zellen (ein Überblick wird gegeben in: Jähne et al., Euphytica 85 (1995), 35–44).
- In der entsprechenden Literatur wird die Transformation von Weizen auf verschiedenen Wegen beschrieben (Übersichtsartikel in Maheshwari et al., Critical Reviews in Plant Science 14 (2) (1995), 149–178). Hess et al., (Plant Sci. 72 (1990), 233) verwendeten die Makroinjektion, um Pollen und Agrobakterien nah zueinander zu bringen. Die Mobilisierung des Plasmids, das das nptII-Gen als selektierbaren Marker enthält, wurde mittels Southern-Blot-Analyse und NPTII-Test bewiesen. Die Transformanten bildeten einen normalen Phänotyp und waren fruchtbar. Die Kanamycin-Resistenz konnte bei zwei aufeinander folgenden Generationen bewiesen werden.
- Die erste transgene, fruchtbare Weizenpflanze, die nach Bombardierung mit an Mikroprojektilen gebundener DNA regeneriert werden konnte, wurde von Vasil et al. (Bio/Technology 10 (1992), 667–674) beschrieben. Das Zielgewebe für die Bombardierung war eine embryogene Kalluskultur (Typ C-Kallus). Das bar-Gen, das eine Phosphinotricin-Phosphotransferase codiert und daher Resistenz gegen das Herbizid Phosphinotricin verleiht, wurde als selektierbares Markergen verwendet.
- Ein weiteres System wurde von Weeks et al. (Plant Physiol. 102 (1993), 1077–1084) ebenso wie von Becker et al. (Plant J. 5(2) (1994), 299–307) beschrieben. Hier wurde das Scutellum von unreifen Embryonen als Zielgewebe für die DNA-Transformation verwendet. In einer einführenden in vitro-Phase wurde das Scutellum zur Induktion von somatischen Embryonen veranlaßt. Die Effizienz der Transformation ist in dem von Becker et al. (vorstehend zitiert) entwickelten System mit 1 transgenen Pflanze pro 83 Embryonen der Art 'Florida' beträchtlich höher als in dem von Weeks et al. entwickelten System mit 1 bis 2 transgenen Pflanzen pro 1000 Embryonen der Art 'Bobwhite'.
- Das von Becker et al. (vorstehend zitiert) entwickelte System bildet eine Basis für die in den Beispielen beschriebenen Transformationsexperimente.
- Nachdem die eingebrachte DNA in das Genom der Pflanzenzelle integriert wurde, bleibt sie dort üblicherweise stabil und verbleibt auch bei den Nachkommen der ursprünglich transformierten Zelle. Sie enthält üblicherweise einen selektierbaren Marker, der den transformierten Pflanzenzellen Resistenz gegen ein Biozid wie Phosphinotricin oder gegen ein Antibiotikum wie Kanamycin, G 418, Bleomycin oder Hygromycin usw. verleiht. Der individuell selektierte Marker sollte daher eine Selektion von transformierten Zellen gegenüber Zellen erlauben, denen die integrierte DNA fehlt.
- Die transformierten Zellen wachsen auf dem üblichen Weg innerhalb der Pflanzen (vgl. auch McCormick et al., Plant Cell Reports 5 (1986), 81–84). Die resultierenden Pflanzen können auf dem üblichen Weg gezüchtet werden und mit Pflanzen gekreuzt werden, die dasselbe transformierte genetische Erbe oder ein anderes genetisches Erbe haben. Die resultierenden hybriden Individuen haben die entsprechenden phänotypischen Eigenschaften. Die Pflanzenzellen produzieren Samen.
- Zwei oder mehrere Generationen sollten gezüchtet werden, um sicherzustellen, ob die phänotypische Eigenschaft stabil behalten wird und ob sie übertragen wird. Darüber hinaus sollten Samen geerntet werden, um sicherzustellen, daß der entsprechende Phänotyp oder andere Eigenschaften erhalten bleiben.
- In den Beispielen werden die folgenden Verfahren verwendet:
- 1. Clonierung
- Für die Clonierung in E. coli wurde der Vektor pBluescript II SK (Stratagene) verwendet.
- 2. Bakterienstämme
- Für den Bluescript-Vektor und für die Antisense-Kontrukte wurde der E. coli-Stamm DH5α (Bethesda Research Laboratories, Gaithersburgh, USA) verwendet, Für das Ausschneiden in vivo wurde der E. coli-Stamm XL1-Blue verwendet.
- 3. Transformation von unreifen Weizenembryonen
- Verwendete Medien
-
- MS: 100 ml/l Makrosalze
- 1 ml/l Mikrosalze
- 2 ml/l Fe/NaEDTA
- 30 g/l Saccharose
-
- (D. Becker und H. Lörz, Plant Tissue Culture Manual (1996), B12: 1–20)
-
- #30: MS + 2.4-D (2 mg/l)
- #31 MS + 2.4-D (2 mg/l) + Phosphinotricin (PPT, aktive Komponente des Herbizids BASTA® (2 mg/l)
- #32 MS + 2.4-D (0,1 mg/l) + PPT (2 mg/l)
- #39 MS + 2.4-D (2 mg/l) + jeweils 0,5 M Mannitose/Sorbit
- Die angegebenen Medien wurden mit KOH auf einen pH-Wert von 5,6 eingestellt und mit 0,3 % Gelrite verstärkt.
- Das Verfahren der Transformation von unreifen Embryonen von Weizen wurde von Becker und Lörz entwickelt und optimiert (D. Becker und H. Lörz, Plant Tissue Culture Manual (1996), B12: 1–20).
- In den Experimenten, die im Folgenden beschrieben werden, wurde das von Becker und Lörz (vorstehend zitiert) festgelegte Protokoll befolgt.
- Für die Transformation werden Ohren mit Caryopsen im Entwicklungsstadium 12 bis 14 Tage nach Anthese geerntet und der Oberflächesterilisation unterworfen. Die isolierten Scutella werden mit auf das Medium gerichteter Embryoachse auf dem Induktionsmedium #30 ausplattiert.
- Nach 2–4 Tagen Vorkultur (26°C, dunkel) werden die Explantate auf das Medium #39 für die osmotische Vorkultur (2–4 Std., 26°C, dunkel) übertragen. Für die biolistische Transformation werden Goldpartikel von 29 μg, auf denen 5 μg oder 73 ng von Ziel-DNA niedergeschlagen wurden, für jeden Schuß verwendet. Da die durchgeführten Experimenten co-Transformationen sind, wird die Ziel-DNA zu dem Niederschlagsgemisch in einem Verhältnis von 1:1 zugegeben, das aus dem Zielgen und einem Resistenzmarkergen (bar-Gen) besteht.
- 4. DIG-Markierung der DNA-Fragmente
- Die Markierung von DNA-Fragmenten, die als Durchmusterungssonden verwendet werden, wurde durch eine spezifische PCR unter Einschluß von DIG-markiertem dUTP (Boehringer Mannheim, Deutschland) erreicht.
- Beispiel 1
- Identifikation, Isolierung und Charakterisierung einer cDNA, die lösliche Stärkesynthase aus Weizen (Tricitum aestivum L., cv. Florida) codiert
- Die Synthese von cDNA resultierte von Poly(A)+-RNA von etwa 21 Tage alten Weizen-Caryopsen. Alle im folgenden erwähnten Experimente wurden gemäß dem Protokoll des Herstellers durchgeführt (ZAP-cDNA Synthesis Kit und ZAP-cDNA Gigapack II Gold Cloning Kit, Stratagene GmbH, Heidelberg).
- Nach der Bestimmung der Titer der cDNA-Bibliothek konnte ein primärer Titer von 1,25 × 10⁶ PbE/ml gefunden werden. Die Durchmusterung wurde mittels eines DIG-markierten DNA-Fragments durchgeführt. Dabei wurde ein DIG-markiertes PCR-Fragment, das ein Subfragment von der löslichen Stärkesynthase aus Reis (Baba et al., vorstehend zitiert) codiert, als Sonde verwendet. Die für die PCR verwendeten Primer hatten die Sequenzen
R1: ACA GGA TCC TGT GCT ATG CGG CGT GTG AAG (Seq ID No. 3)
R2: TTG GGA TCC GCA ATG CCC ACA GCA TTT TTT TC (Seq ID No. 4) - Für die Durchmusterung wurden etwa 5 × 10⁴ PbE pro Platte (15 cm Durchmesser) ausplattiert. Positive Clone wurden aussortiert. Mittels in vivo-Ausschneiden wurden aussortierte Clone als pBluescript SK (–)-Phagemide erhalten.
- Nach der Analyse der Clone mittels Minipräparationen und nach der Restriktion der Plasmid-DNA wurde der TaSSS-Clon weiter verarbeitet.
- Beispiel 2
- Sequenzanalyse der cDNA-Insertion des Plasmids pTaSSS
- Die Plasmid-DNA des Clons TaSSS wurde isoliert und die Sequenz der cDNA-Insertion wurde mittels des Didesoxynucleotid-Verfahrens bestimmt (Sanger et al., Proc. Natl. Acad. Sci. USA 74 (1977), 5463–5467).
- Zuerst wurde eine partielle Sequenz bestimmt, die die Nucleotide 186–2239 umfaßt, wie dargestellt in Seq ID No. 1, die einen zusätzliche G-Rest an ihrem 5'-Ende enthielt. Die Insertion des Clons TaSSS hat eine Länge von 2239 bp und stellt eine cDNA nahezu vollständiger Länge dar. Die Nucleotidsequenz ist unter Seq ID No. 1 dargestellt. Die entsprechende Aminosäuresequenz ist unter Seq ID No. 2 dargestellt. Eine mutmaßliche Signalpeptidspaltstelle liegt zwischen den Aminosäureresten 33 und 34, angezeigt in Seq ID No. 1.
- Eine Sequenzanalyse und ein Vergleich mit bereits publizierten Sequenzen zeigten, daß die unter Seq ID No. 1 gezeigte Sequenz neu ist und eine codierende Region nahezu voller Länge umfaßt, die Homologien mit löslichen Stärkesynthasen von anderen Organismen zeigt. Mittels der partiellen cDNA-Sequenz von TaSSS ist es dem Durchschnittsfachmann auf dem Fachgebiet der Molekularbiologie möglich, die fehlende Region an der 5'-Region zu isolieren und damit einen vollständigen cDNA-Clon zu erhalten. Um dies zu tun, kann die 5'-Region des Clons TaSSS als Sonde für die Durchmusterung der gesamten cDNA verwendet werden und ein vollständiger Clon kann unter Verwendung von Standardverfahren mittels Hybridisierung isoliert werden. Andererseits kann das fehlende 5'-Ende unter Verwendung eines 5'-Race-Verfahrens (z.B. Boehringer Mannheim oder andere Hersteller) erhalten werden.
- Beispiel 3
- Produktion des Pflanzentransformationsvektors pTaSSS-as
- Um eine Antisense-RNA für die isolierte cDNA aus Weizen zu exprimieren, wurde ein Pflanzentransformationsvektor auf der Basis von pUC19 als Grundplasmid entworfen, bei dem die cDNA-Insertion des Plamids pTaSSS mit einem DNA-Fragment in der Antisense-Orientierung verknüpft ist, wobei die Expression vom Ubiquitin-Promotor reguliert wird. Der Promotor besteht aus dem ersten nicht translatierten Exon und dem ersten Intron des Ubiquitin1-Gens von Mais (Christensen A.H. et al., Plant Molecular Biology 18 (1992), 675–689).
- Teile des Polylinkers und der NOS-Terminator werden von dem Plasmid pAct1.cas erhalten (CAMBIA, TG 0063; Cambia, GPO Box 3200, Canberra ACT 2601, Australien). Vektorkonstrukte mit diesem Terminator und Konstrukte, die auf pAct1.cas beruhen, sind beschrieben in McElroy et al. (Molecular Breeding 1 (1995), 27–37). Für die Transformation von Weizen wurde pTaSSS, wie vorstehend beschrieben, verwendet.
- Illustrationsbeispiel 4
- Identifikation, Isolation und Charakterisierung einer anderen cDNA, die Stärkesynthase aus Weizen (Tricitum aestivum L., cv Florida) codiert
- Bei einem Sequenzvergleich der bisher bekannten Sequenzen, die lösliche und an Granula gebundene Stärkesynthasen von Pflanzen codieren, war es offensichtlich, daß es innerhalb der verschiedenen Proteine drei hoch konservierte Regionen gibt.
- Um lösliche Stärkesynthasen von Weizen zu isolieren, wurden diese drei Regionen selektiert, um polyclonale Peptidantikörper zu erzeugen. Dafür wurden drei synthetische Polypeptide mit den folgenden Aminosäuresequenzen produziert:
Peptid 1: NH2-PWSKTGGLGDVC-COOH (SEQ ID NO: 7)
Peptid 2: NH2-PSRFEPCGLNQLY-COOH (SEQ ID NO: 8)
Peptid 3: NH2-GTGGLRDTVENC-COOH (SEQ ID NO: 9) - Diese Peptide werden mit dem KLH-Träger („keyhole limpet homocyanin") gekoppelt und anschließend für die Produktion von polyclonalen Antikörpern in Kaninchen verwendet (Eurogentec, Seraing, Belgien).
- Die resultierenden Antikörper wurden wie folgt bezeichnet:
anti-SS1 polyclonaler Antikörpern gegen Peptid 1
anti-SS2 polyclonaler Antikörpern gegen Peptid 2
anti-SS3 polyclonaler Antikörpern gegen Peptid 3 - Diese Antikörper wurden anschließend verwendet, um eine cDNA-Bibliothek aus Weizen-Caryopsen nach Sequenzen zu durchmustern, die Stärkesynthasen von Weizen codieren. Zu diesem Zweck wurde eine cDNA-Expressionsbibliothek verwendet, die, wie in Beispiel 1 beschrieben, produziert worden war. Für die Analyse der Phagenplaques wurden diese auf Nitrocellulose-Filter übertragen, die zuvor 30–60 Minuten in einer 10 mM IPTG-Lösung inkubiert und anschließend auf Whatman-Papier getrocknet worden waren. Die Übertragung dauerte bei 37°C 3 Std. Danach wurden die Filter bei Raumtemperatur 30 Min. in einer Blockierungslösung inkubiert und zweimal 5–10 Min. in TBST-Puffer gewaschen. Die Filter wurden bei Raumtemperatur 1 Std. oder bei 4°C 16 Std. mit den polyclonalen Antikörpern in einer geeigneten Verdünnung geschüttelt. Die Identifikation von Plaques, die ein Protein exprimieren, das von einem der Antikörper erkannt wurde, wurde mittels des Immun-Blot Assay Kit; Goat Anti-Rabbit IgG (Biorad) gemäß den Anweisungen des Herstellers durchgeführt.
- Phagenclone der cDNA-Bibliothek, die ein Protein exprimienen, das von einem der Antikörper erkannt worden war, wurden unter Verwendung von Standardverfahren weiter gereinigt. Mittels des in vivo-Ausschneideverfahrens (Strategene) wurden von positiven Phagenclonen E. coli-Clone produziert, die ein doppelsträngiges pBluescnipt II SK-Plasmid mit der entsprechenden cDNA-Insertion zwischen der EcoRI- und der XhoI-Stelle des Polylinkers enthielten. Nach der Überprüfung der Größe und des Restriktionsmusters der Insertion wurde ein geeigneter Clon, TaSS1, einer Sequenzanalyse unterzogen.
- Illustrationsbeispiel 5
- Sequenzanalyse der cDNA-Insertionen des pTaSS1-Plamids
- Die Plasmid-DNA wurde von dem pTaSS1-Clon isoliert und die Sequenz der cDNA-Insertion wurde mittels Standardverfahren unter Verwendung des Didesoxynucleotid-Verfahrens bestimmt (Sanger et al., Proc. Natl. Acad. Sci. USA 74 (1977), 5463–5467).
- Zuerst wurde eine partielle Sequenz bestimmt, die die Nucleotide 1084 bis 2825 umfaßt, wie dargestellt in Seq ID No. 5.
- Die Insertion des Clons TaSS1 hat eine Länge von 2825 bp und stellt eine vollständige cDNA dar. Die Nucleotidsequenz ist unter Seq ID No. 5 dargestellt. Die entsprechende Aminosäuresequenz ist unter Seq ID No. 6 dargestellt.
- Eine Sequenzanalyse und ein Vergleich mit bereits publizierten Sequenzen zeigte, daß die unter Seq ID No. 5 gezeigte Sequenz neu ist und eine codierende Region umfaßt, die Homologien mit Stärkesynthasen von anderen Organismen zeigt. Es wird angenommen, daß diese cDNA ein Protein codiert, das die biologische Aktivität einer an Granula gebundenen Stärkesynthase hat.
- Darüber hinaus wurde gefunden, daß wegen Homologien mit bekannten Consensussequenzen für Signalpeptidspaltstellen das vermutliche Signaltransitpeptid zwischen den Positionen 57 und 58 oder zwischen den Positionen 60 und 61 in der Aminosäuresequenz abgespalten wird, wie sie in Seq ID No. 6 gezeigt wird.
- Beispiel 6
- Produktion des Pflanzentransformationsvektors pTaSS1-as
- Um eine partielle Antisense-RNA für die isolierte cDNA aus Weizen zu exprimieren, wurde ein Pflanzentransformationsvektor auf der Basis von pUC19 als Grundplasmid entworfen. Der Pflanzentransformationsvektor enthält partiell die cDNA-Insertion des Plamids pTaSSS1 in der Antisense-Orientierung. Die Expression wird vom Ubiquitin-Promotor reguliert. Der Promotor besteht aus dem ersten nicht translatierten Exon und dem ersten Intron des Ubiquitin1-Gens von Mais (Christensen A.H. et al., Plant Molecular Biology 18 (1992), 675–689).
- Teile des Polylinkers und der NOS-Terminator sind von dem Plasmid pAct1.cas abgeleitet (CAMBIA, TG 0063; Cambia, GPO Box 3200, Canberra ACT 2601, Australien). Vektorkonstrukte mit diesem Terminator und Konstrukte, die auf pAct1.cas beruhen, sind beschrieben in McElroy et al. (Molecular Breeding 1 (1995), 27–37).
- Für die Transformation von Weizen wird der pTaSS1-as-Vektor, wie vorstehend beschrieben, verwendet.
- Beispiel 7
- Komplementierung einer E. coli-Mutante mit einem cDNA-Clon, der eine lösliche Stärkesynthase aus Weizen codiert
- Die Enzymaktivität der löslichen Stärkesynthase, die von dem cDNA-Clon TaSSS (Beispiel 2) codiert wird, wurde durch Komplementationsexperimente unter Verwendung der E. coli-Mutante Hfr G6MD2 (M. Schwartz-Stamm; CGSC # 5080; E. coli Genetic Stock Center, New Haven, USA) als Wirt für die Genexpression analysiert. Die E. coli-Mutante zeigt eine Deletion des glg-Operons, das die bakterielle ADP-Glucosepyrophosphorylase (glg C), Glycogensynthase (glg A) und das Branching Enzyme (glg B) codiert. Diese Mutation resultiert in dem Unvermögen zur Glycogensynthese über den ADP-Glucose-Reaktionsweg. Zusätzlich verhindert eine Deletion des mal A-Operons die Synthese von linearen α-1,4-Glucanen durch das Enzym Amylomaltase (mal Q).
- Die Funktionsfähigkeit der löslichen Stärkesynthase wurde durch Cotransformation der Plasmide pTaSSSΔ188 und pACAG in die Mutante G6MD2 getestet. Das Plasmid pTaSSSΔ188 umfaßt die Nucleotide 188–2239 der cDNA-Sequenz von 2239 bp, die die lösliche Stärkesynthase codiert. Die cDNA wird als EcoRI/XhoI-Fragment in die Polylinkerregion des pBluescript-Vektors (Stratagene) inseriert. Dies erlaubt die Fusion des N-Terminus des α-Peptids der beta- Galactosidase, die durch den Vektor codiert wird, im Rahmen mit einem Teil der löslichen Stärkesynthase.
- Eine erfolgreiche Komplementierung der Glycogensynthase (glg A)-Mutation in G6MD2 ist abhängig von der Expression einer ADP-Glucose-Pyrophosphorylaseaktivität, die verantwortlich ist für die Bereitstellung von ADP-Glucose, dem Substrat für die Synthese von α-1,4-Glucanen. Daher wurde das Plasmid pACAG (Abel G.J.W., (1995), Untersuchungen zur Funktion von Stärke-Synthasen in der Kartoffel (Solanum tuberosum L.), Dissertation, Freie Universität Berlin), das die codierende Region des glg C-Lokus umfaßt, der von dem E. coli-Stamm LCB 618 (Baecker et al., J. Biol. Chem, 258 (1983) 5084–5088) isoliert wurde, unter der Kontrolle des lacZ-Promotors cotransformiert. Die codierte ADP-Glucose-Pyrophosphorylaseaktivität wird weniger durch den Aktivator Fructose-1,6-biphosphat und den Inhibitor AMP beeinflußt, was in einer ausreichenden Bereitstellung von ADP-Glucose resultiert.
- Zellen, die mit den Konstrukten pTaSSSΔ188 und pACAG cotransformiert waren, wurden auf LB-Agarplatten ausplattiert, die mit 1 % Glucose, 1 mM IPTG und 50 μM Diaminopimelat ergänzt waren. Die resultierenden Kolonien wurden mit Joddampf gefärbt. Die transformierten G6MD2-Zellen zeigten eine hellblau-bräunliche Farbe im Gegensatz zu der gelblichen Farbe der nicht transformierten Kolonien, was die ADP-Glucose: α-1,4-D-Glucan-4-α-glucosyltransferaseaktivität des exprimierten Fusionsproteins zeigt.
- Das System wurde durch Jodfärbung von G6MD2-Zellen überprüft, die mit den Konstrukten pACAG und pEc5.3 cotransformiert waren. Das Plamid pEc5.3 umfaßt ein Glycogensynthase (glg A)-Gen, das mittels der PCR-Technik aus dem E. coli-Stamm DH5α isolierte wurde (Abel G.J.W., (1995), Untersuchungen zur Funktion von Stärke-Synthasen in der Kartoffel (Solanum tuberosum L.), Dissertation, Freie Universität Berlin). Die transformierten Zellen zeigten nach der Färbung mit Jod eine dunkelblaue Farbe, was die Synthese von α-1,4-Glucanen zeigt.
- SEQUENZPROTOKOLL
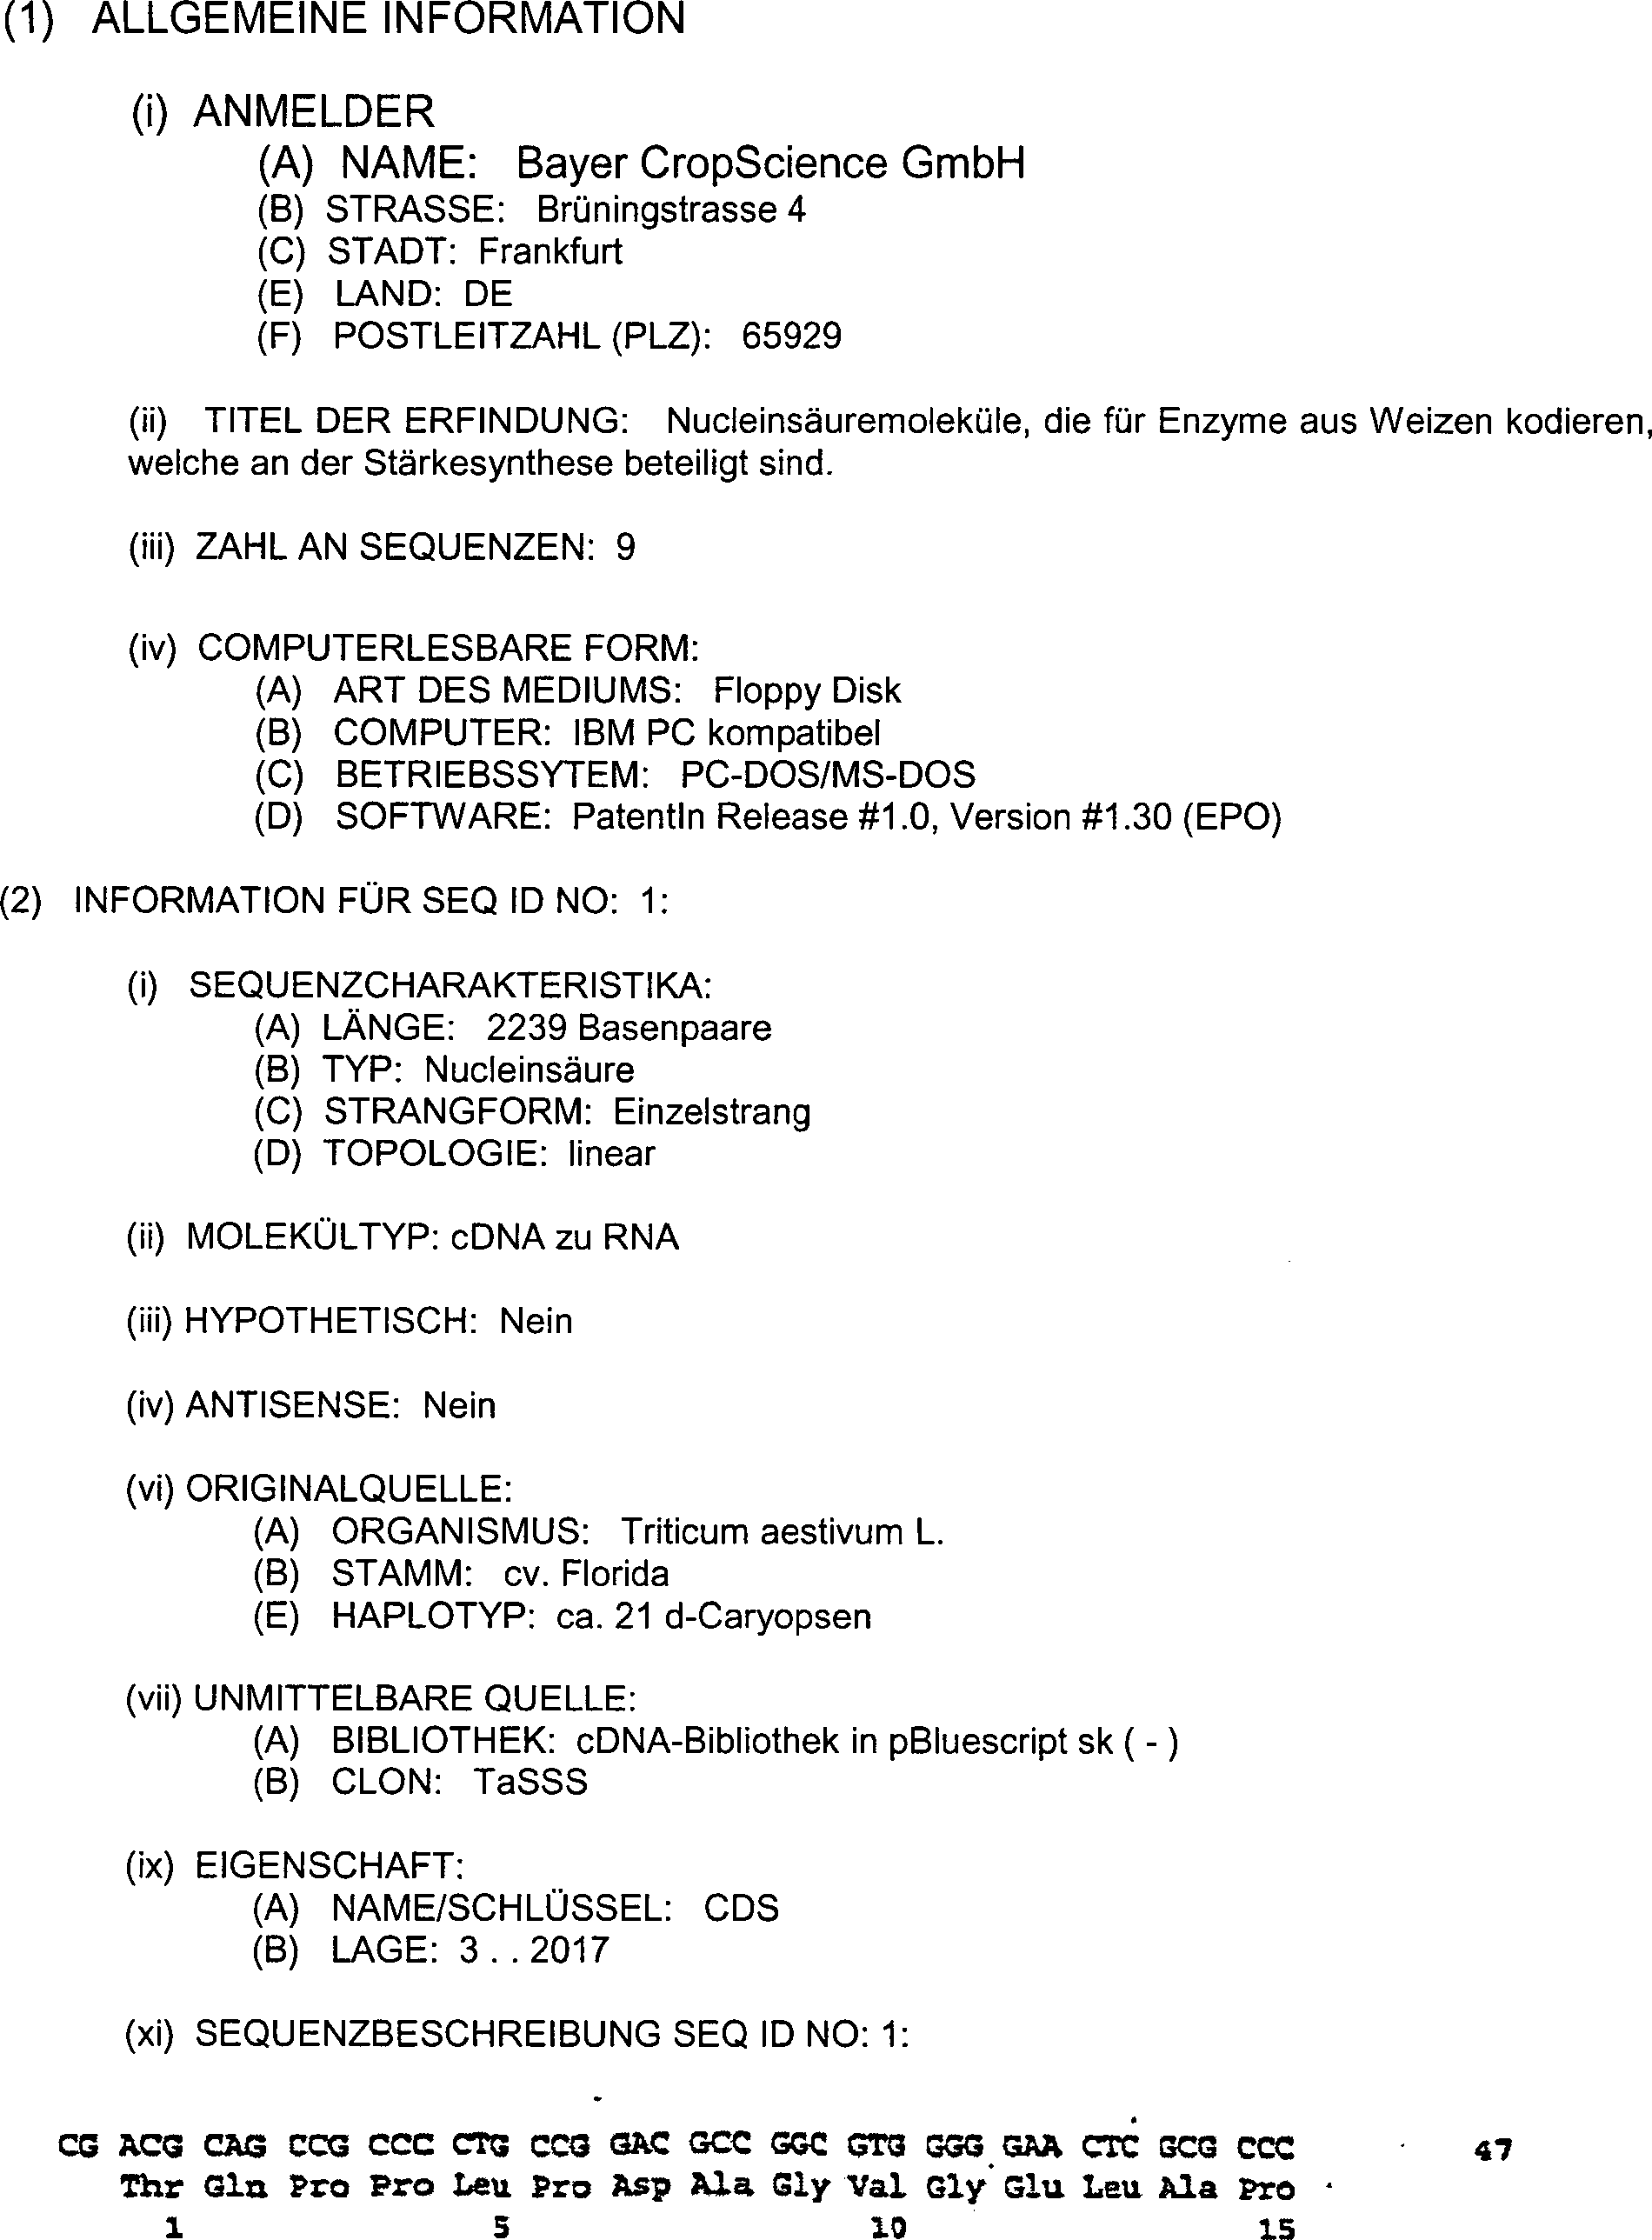
-
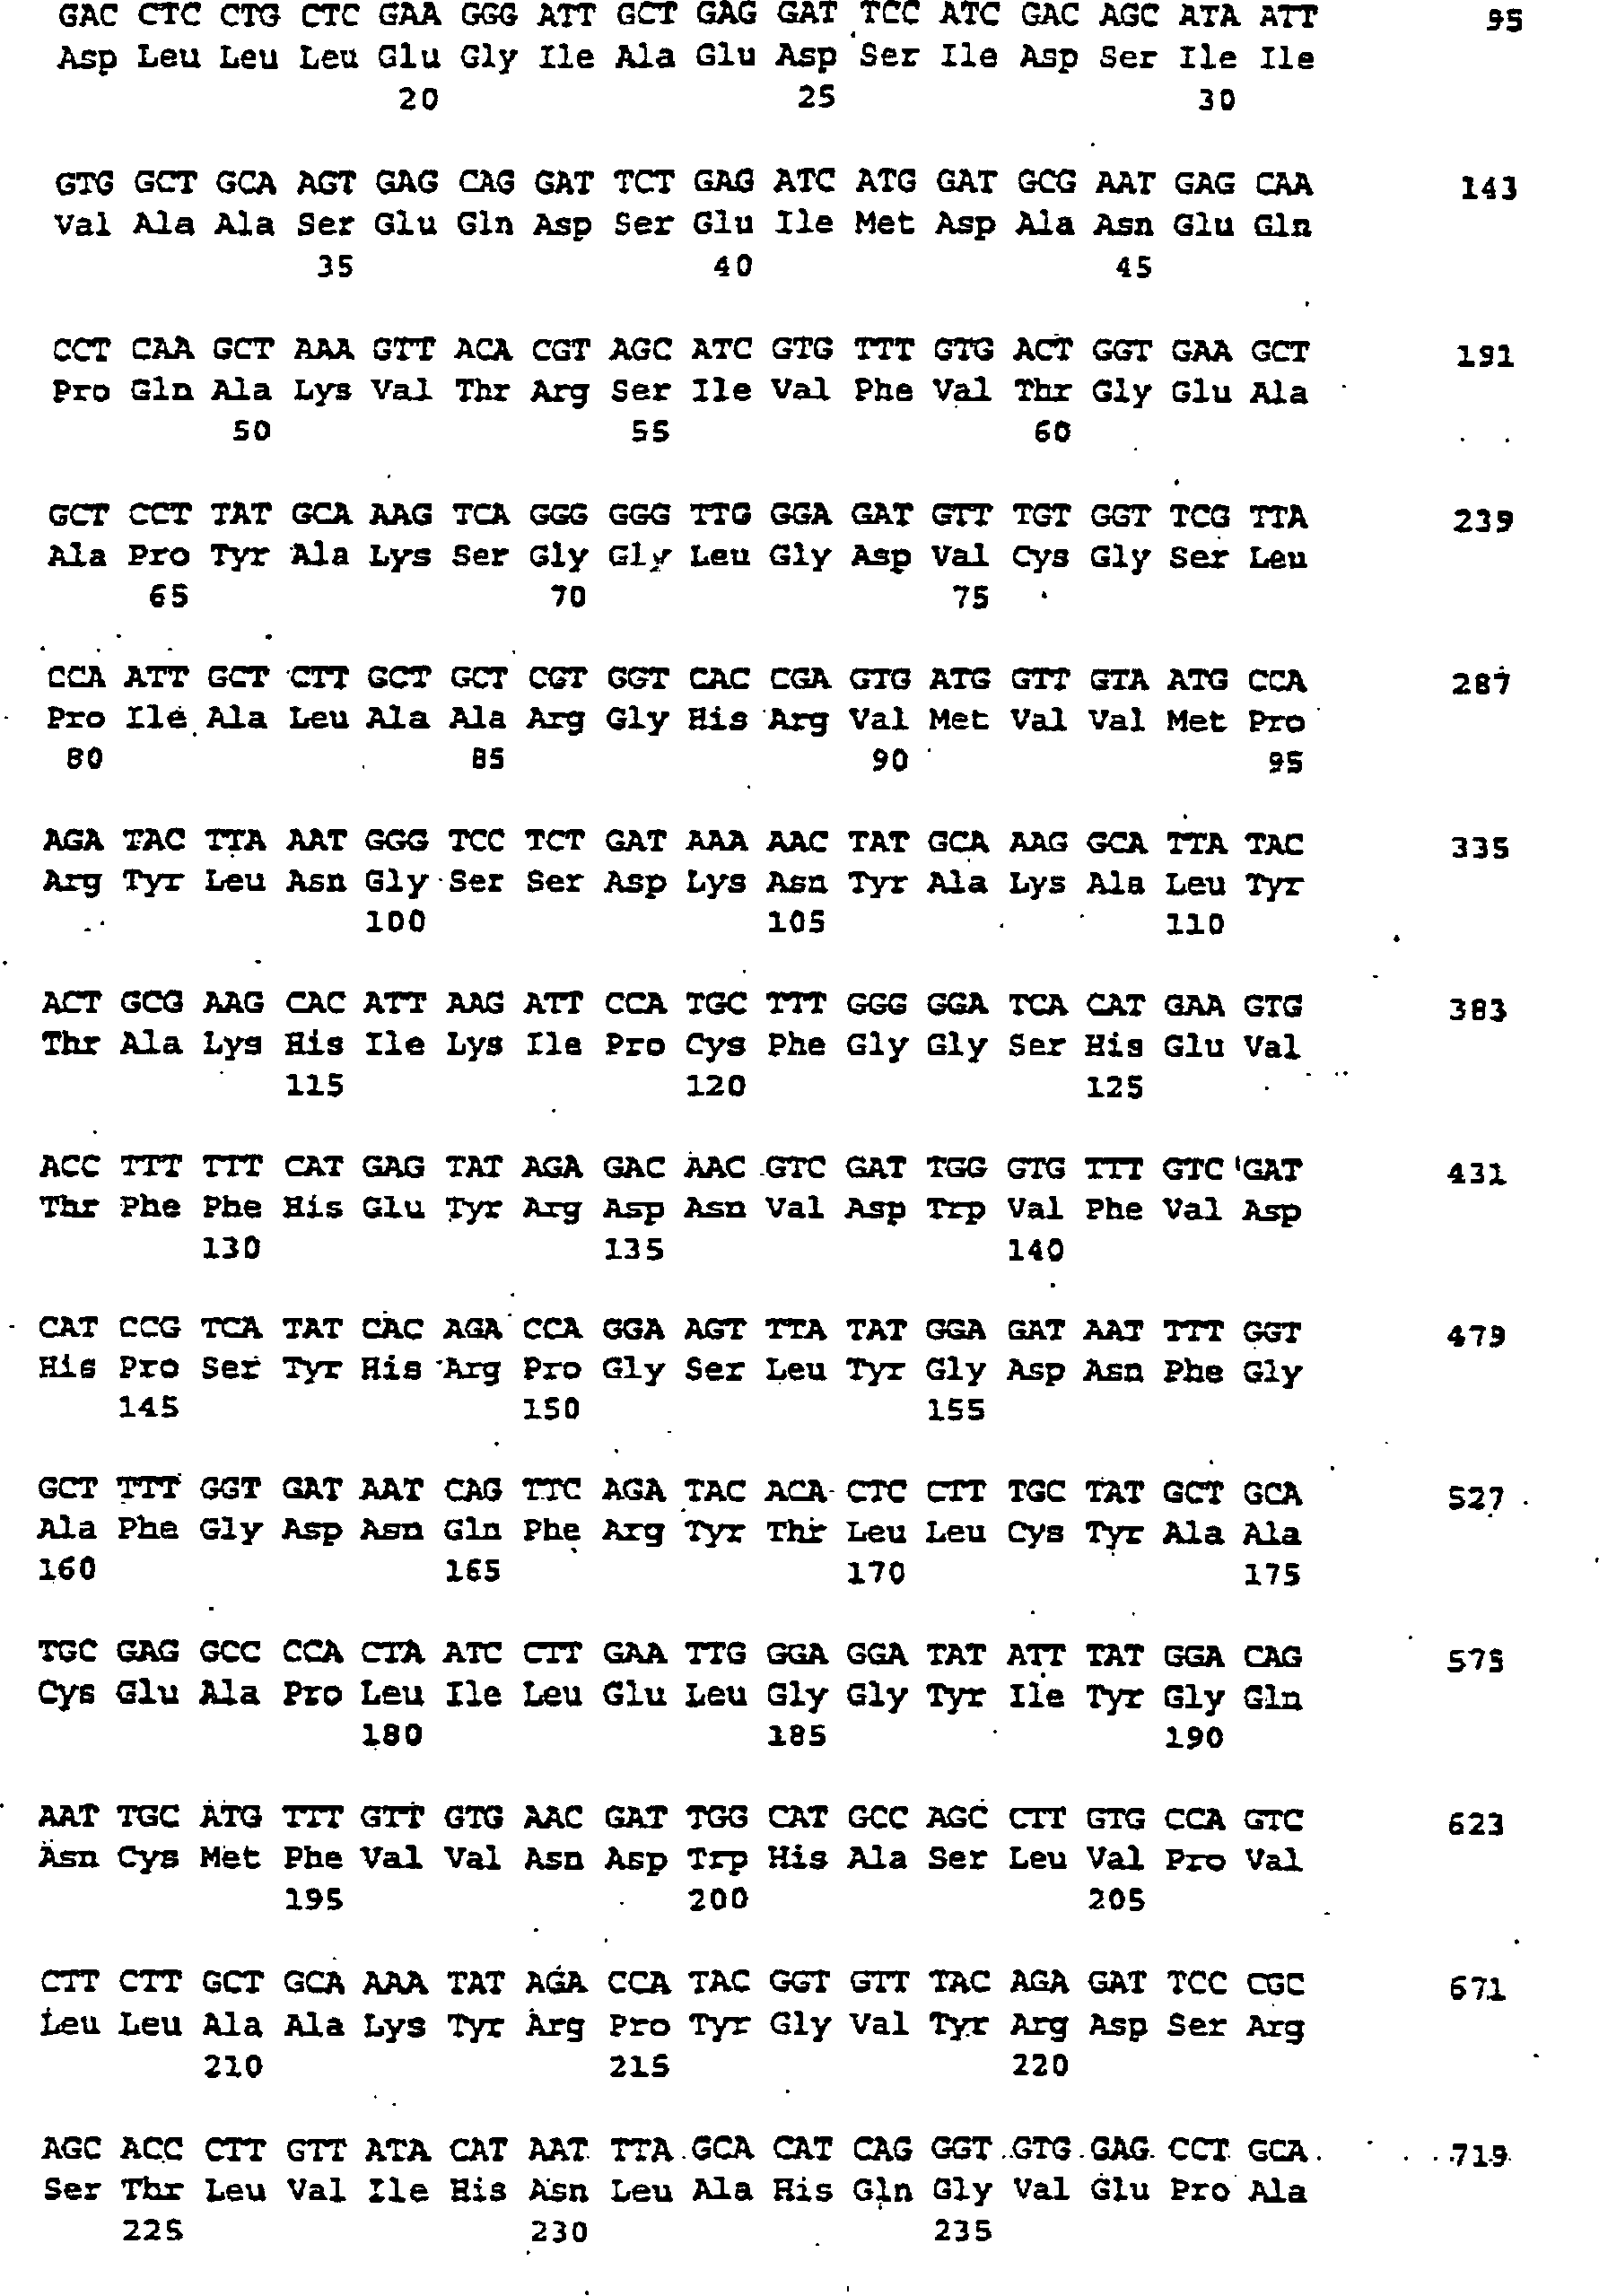
-

-

-
-
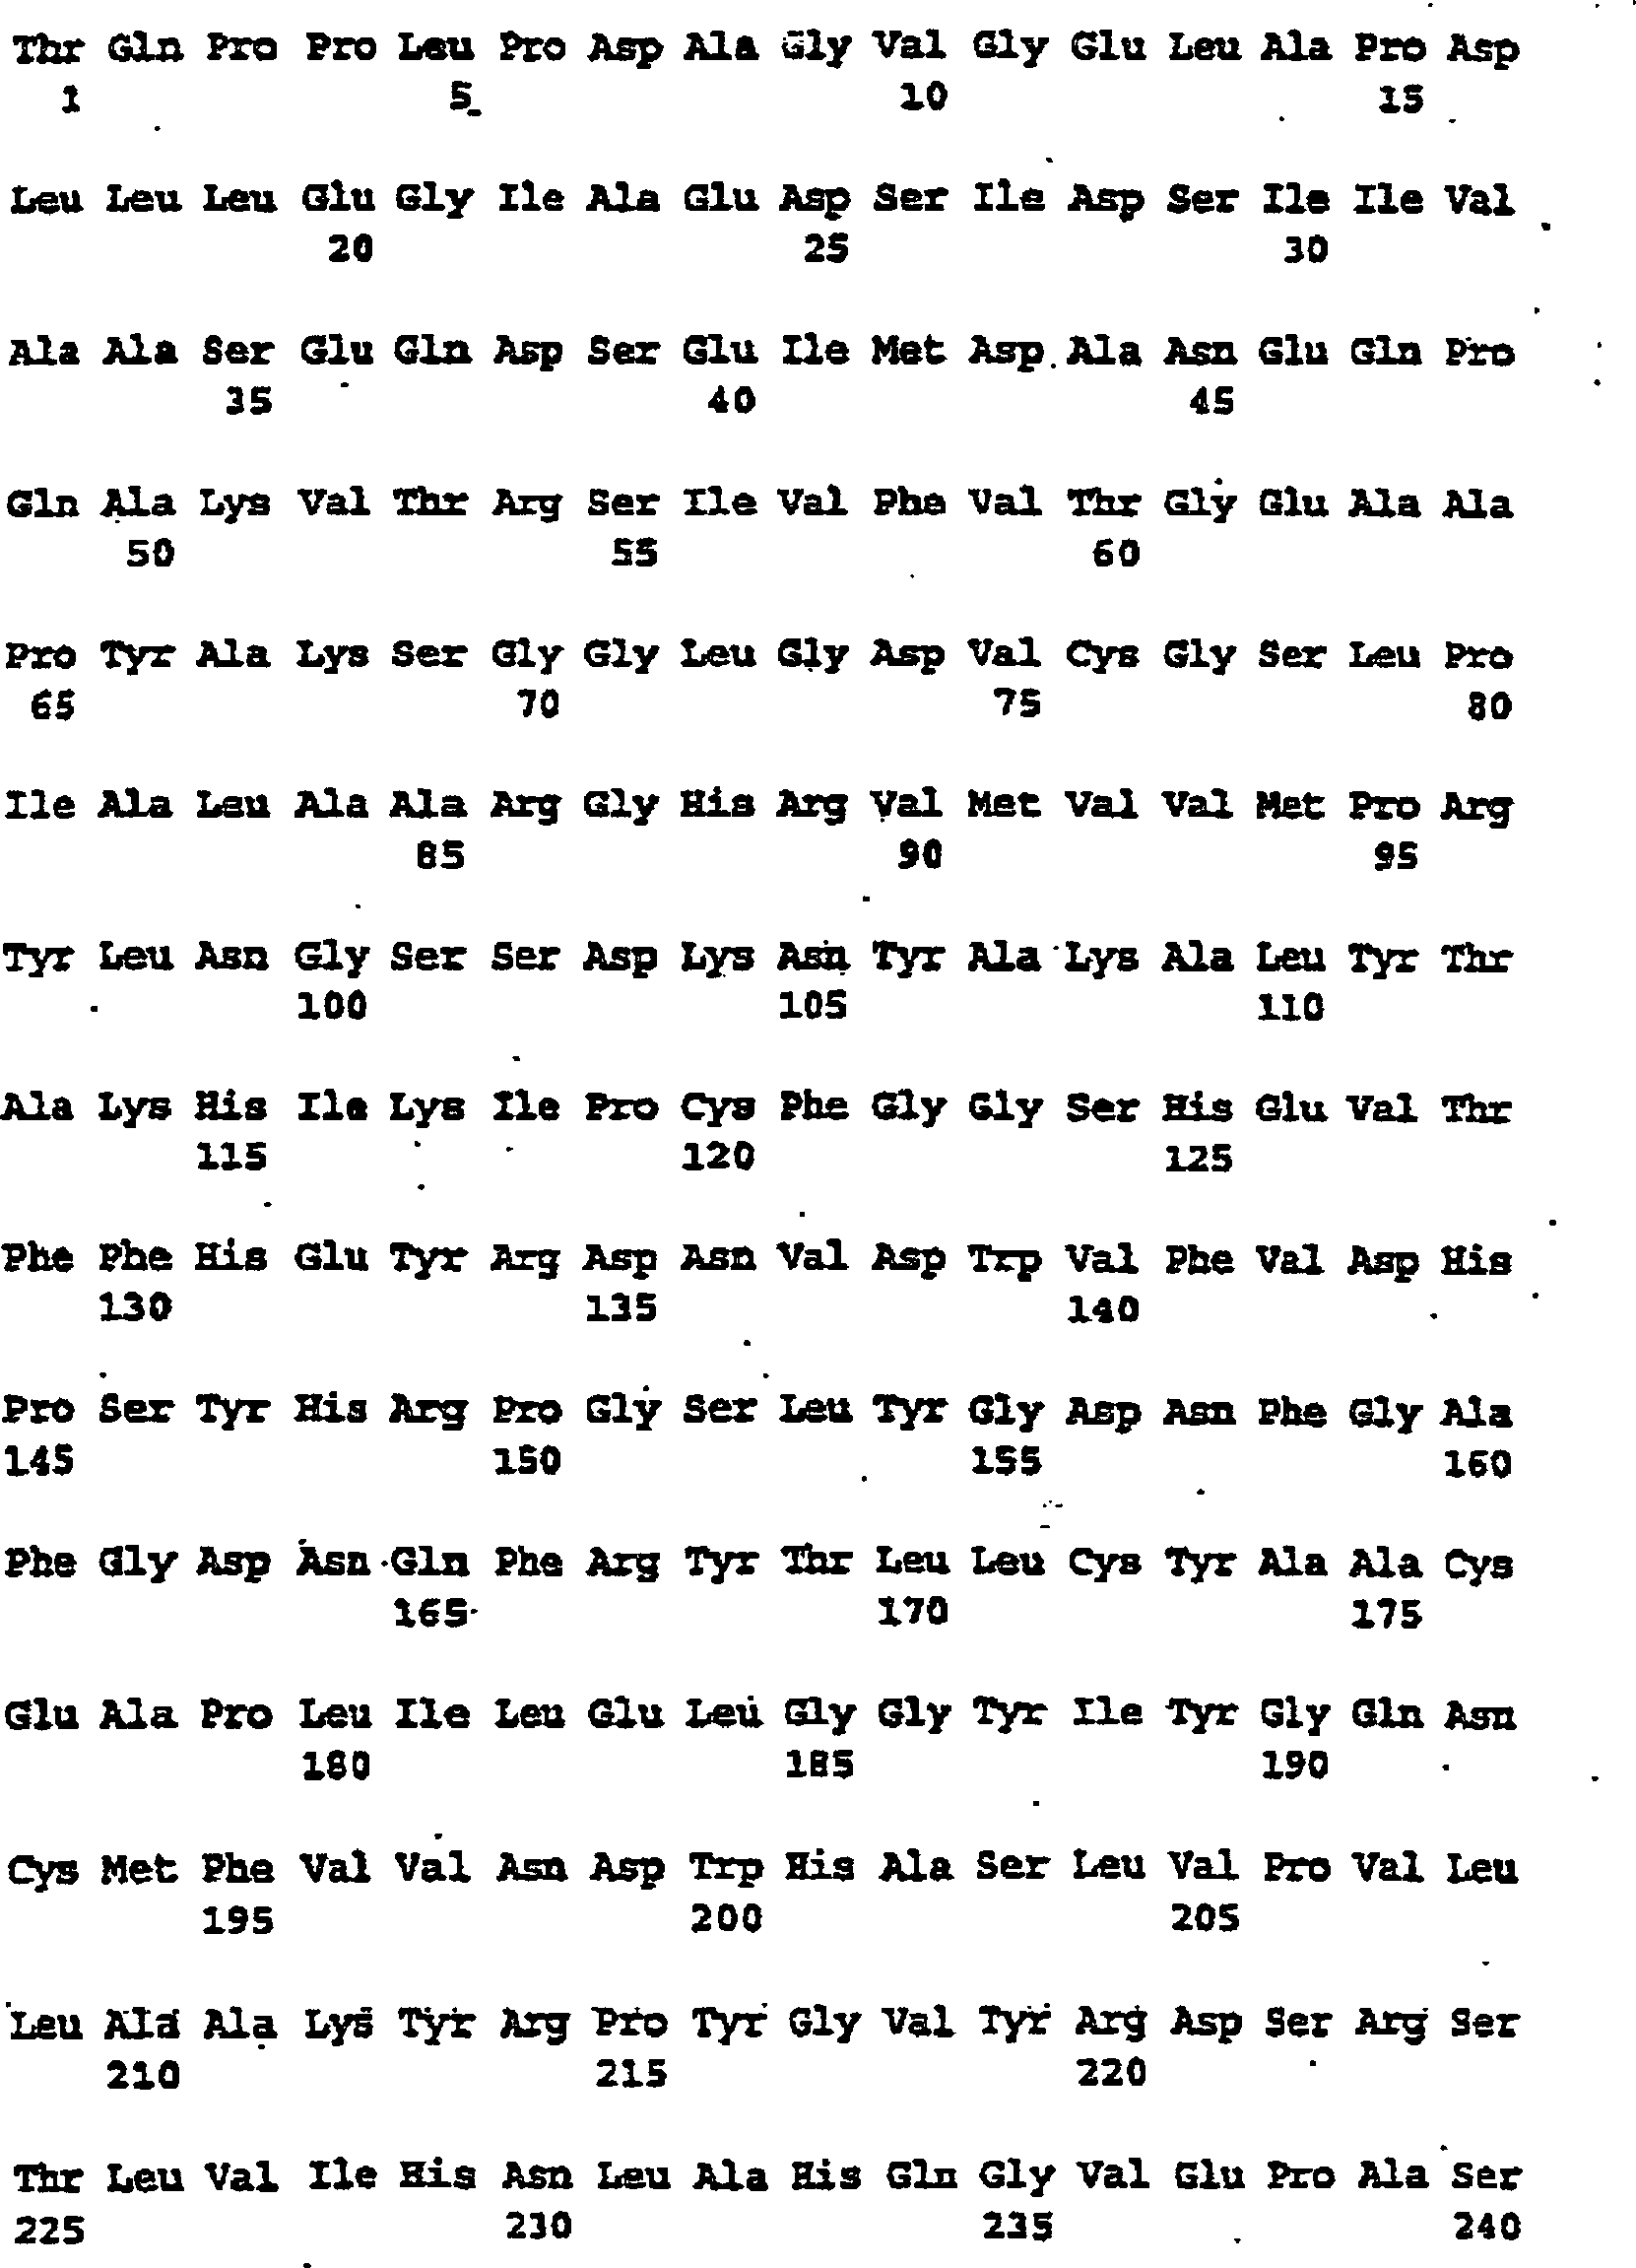
-

-
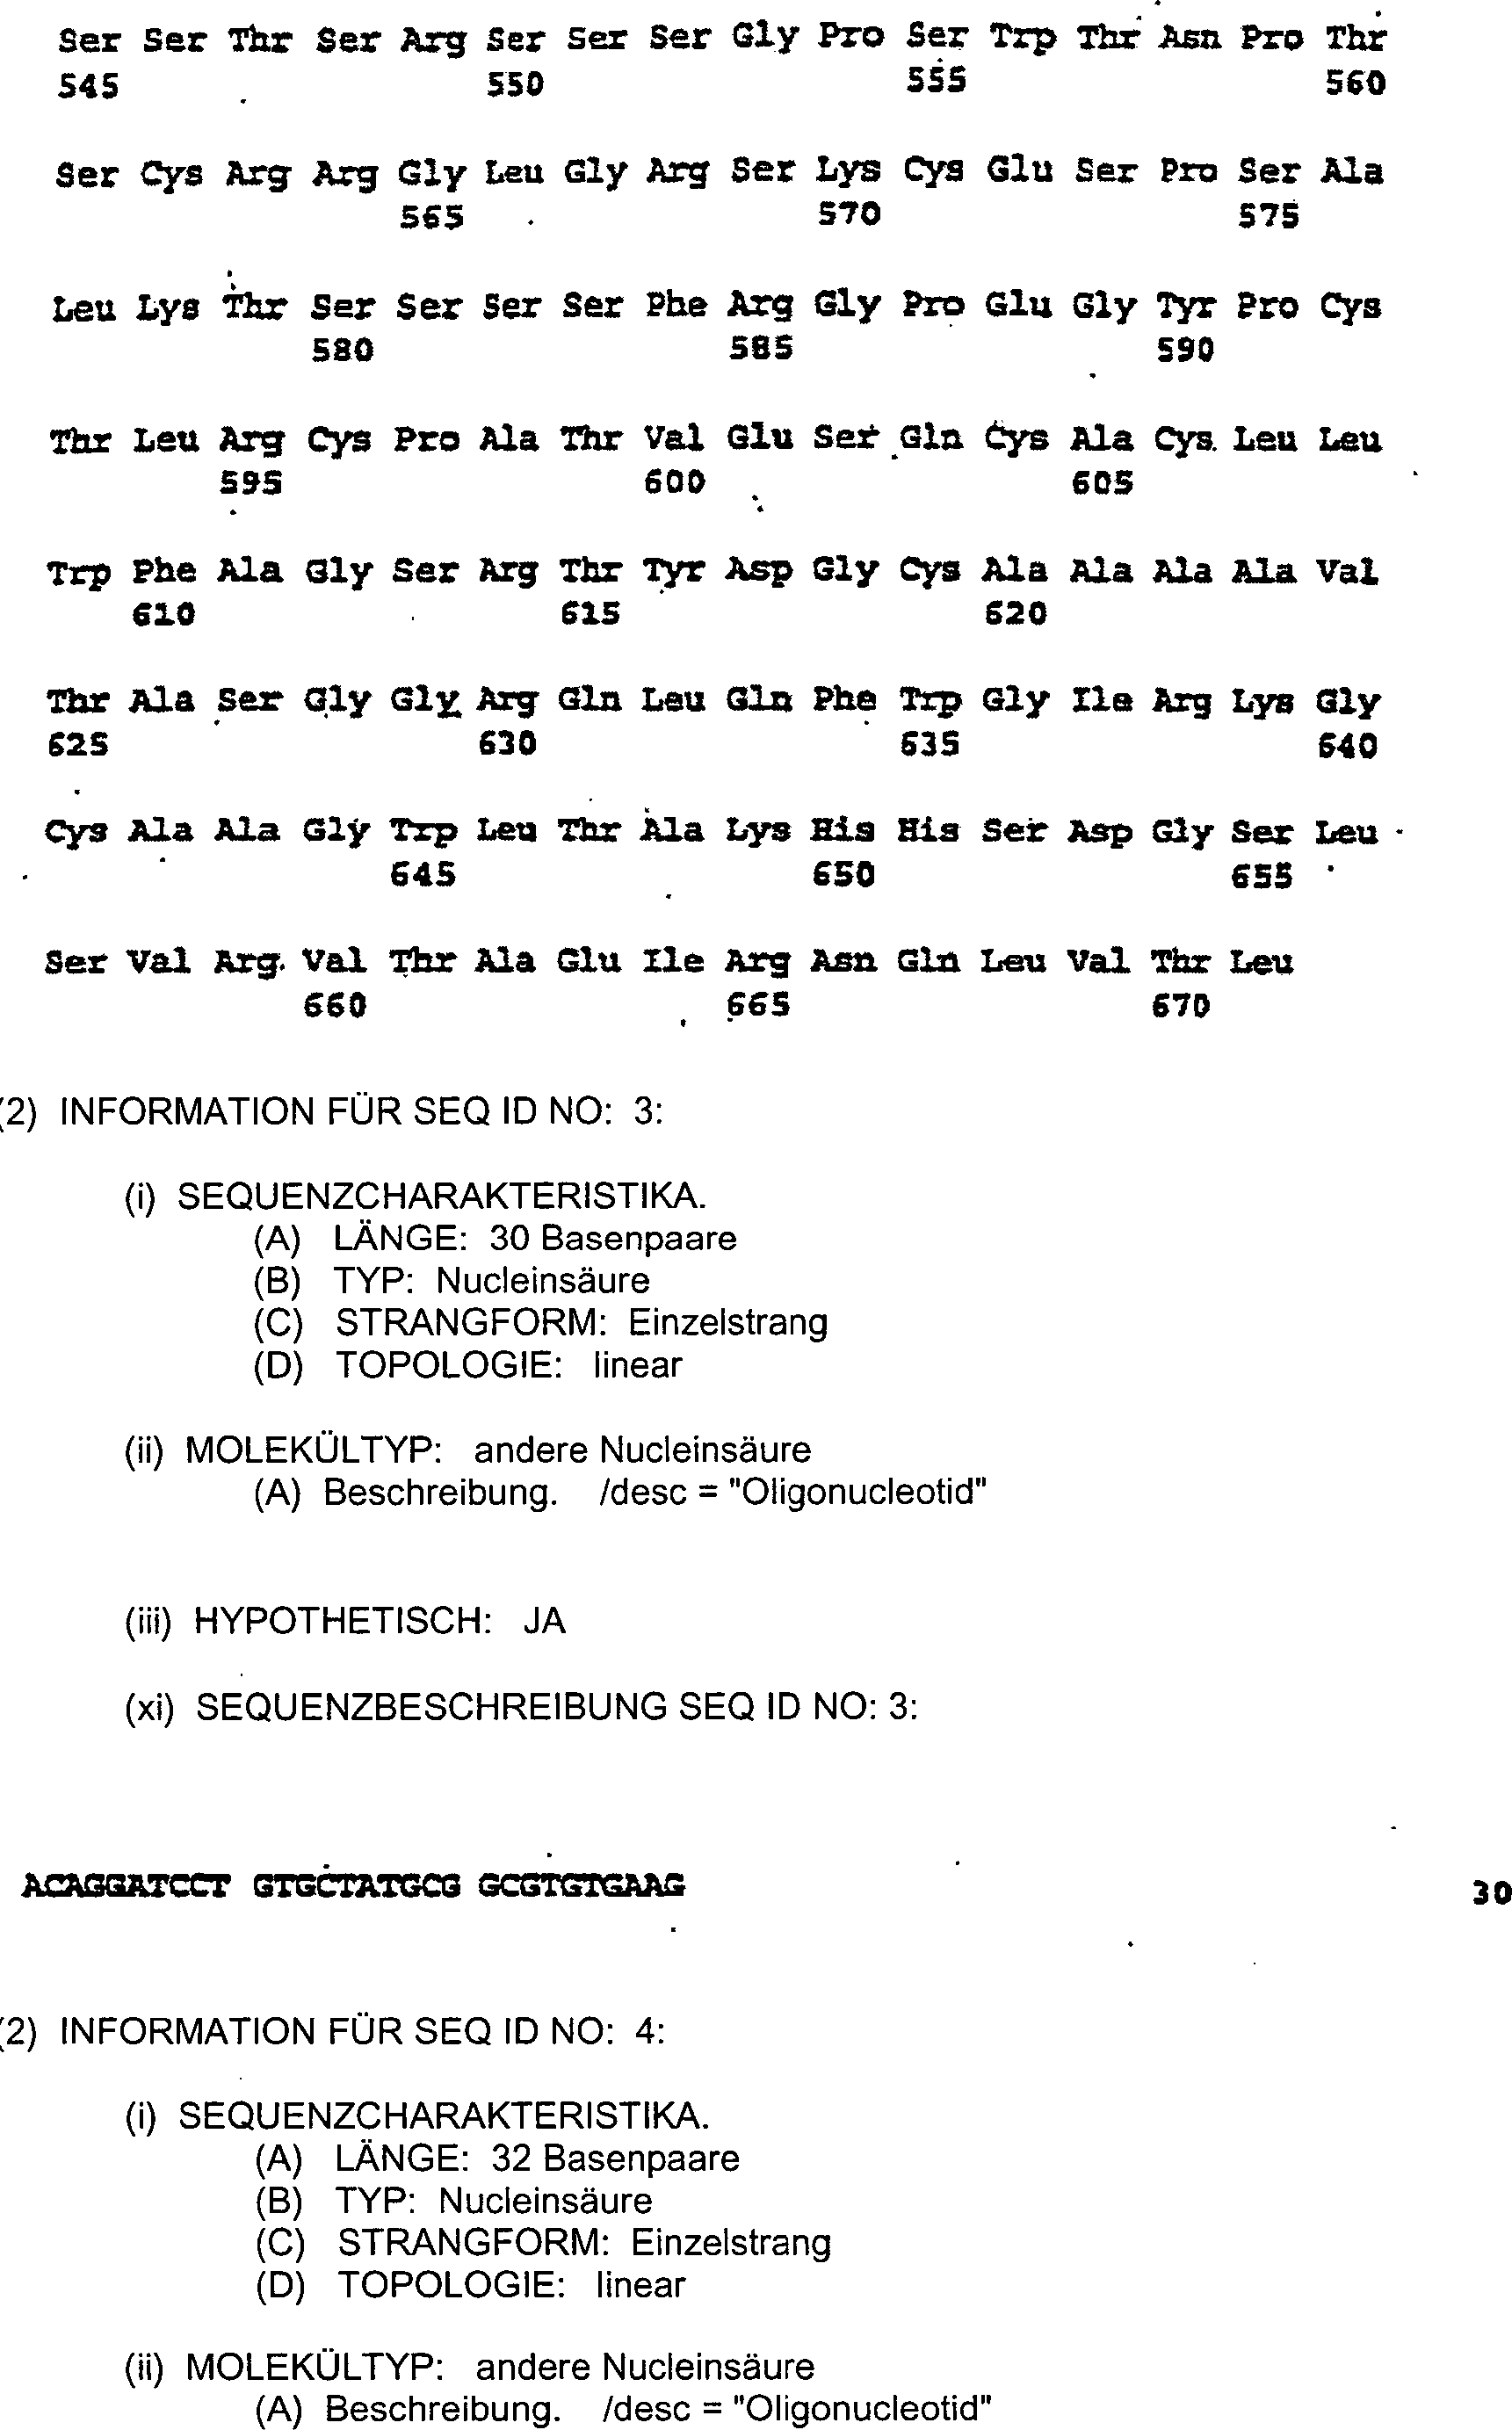
-

-

-
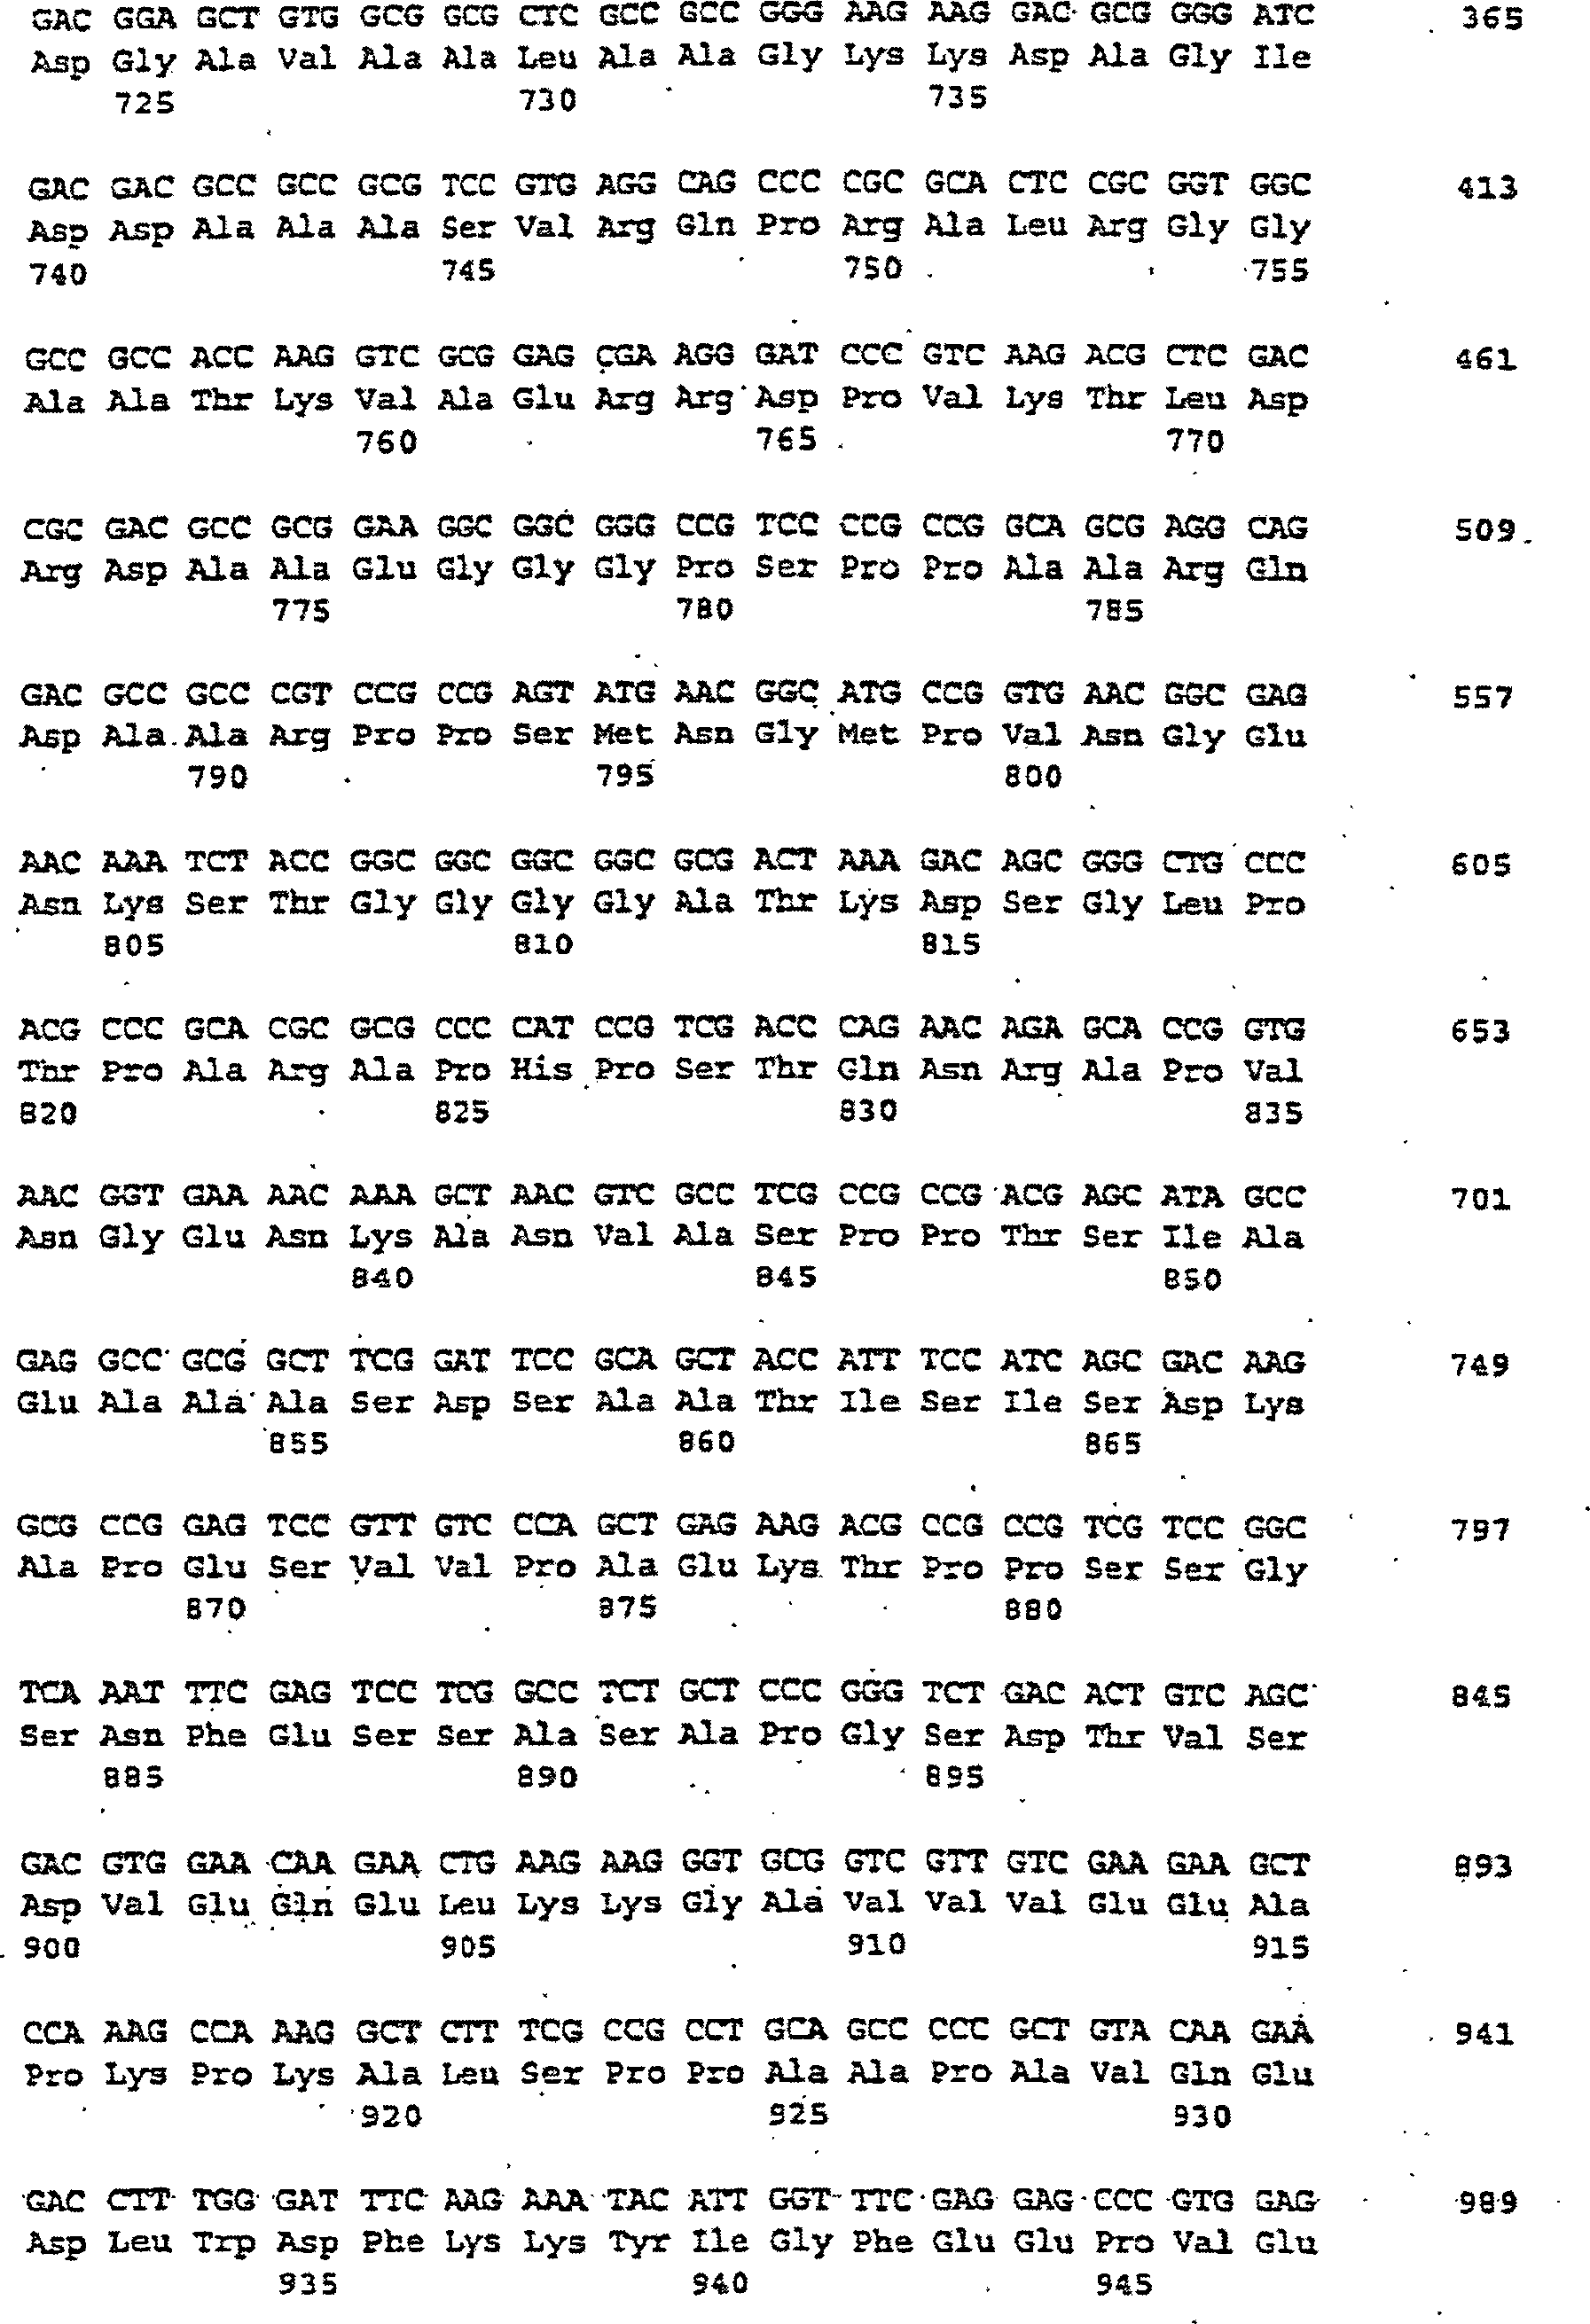
-

-
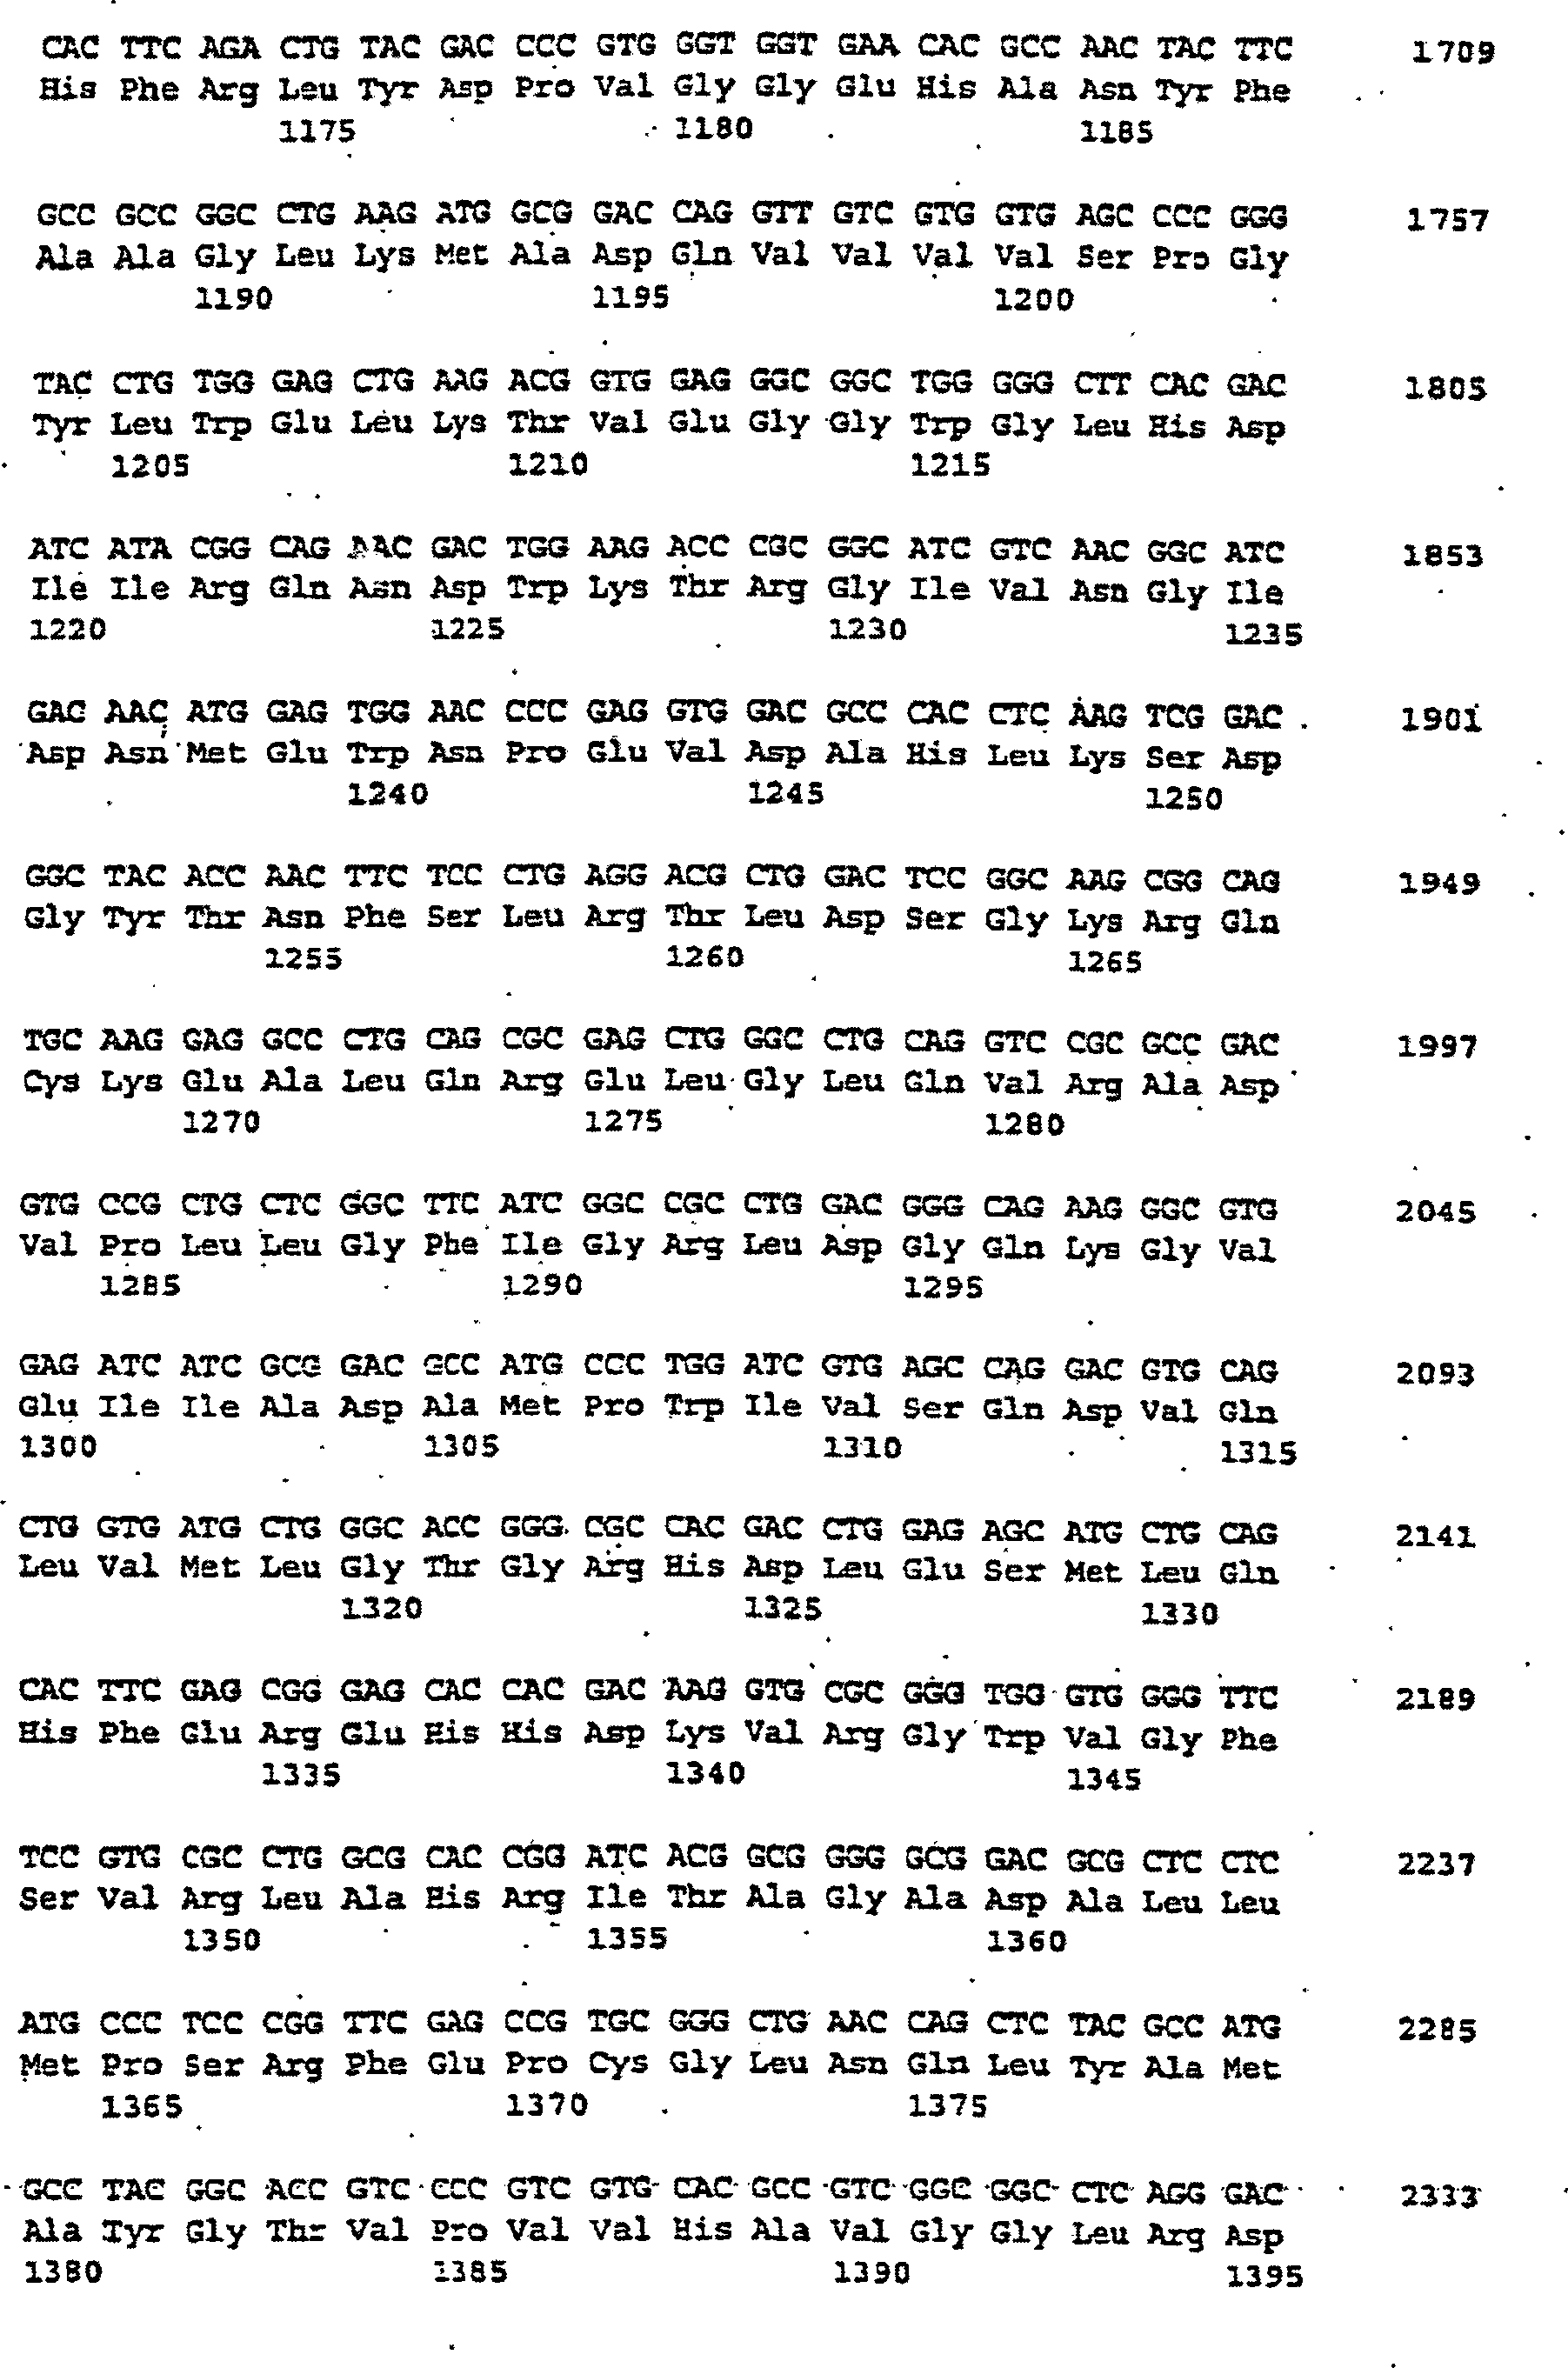
-

-
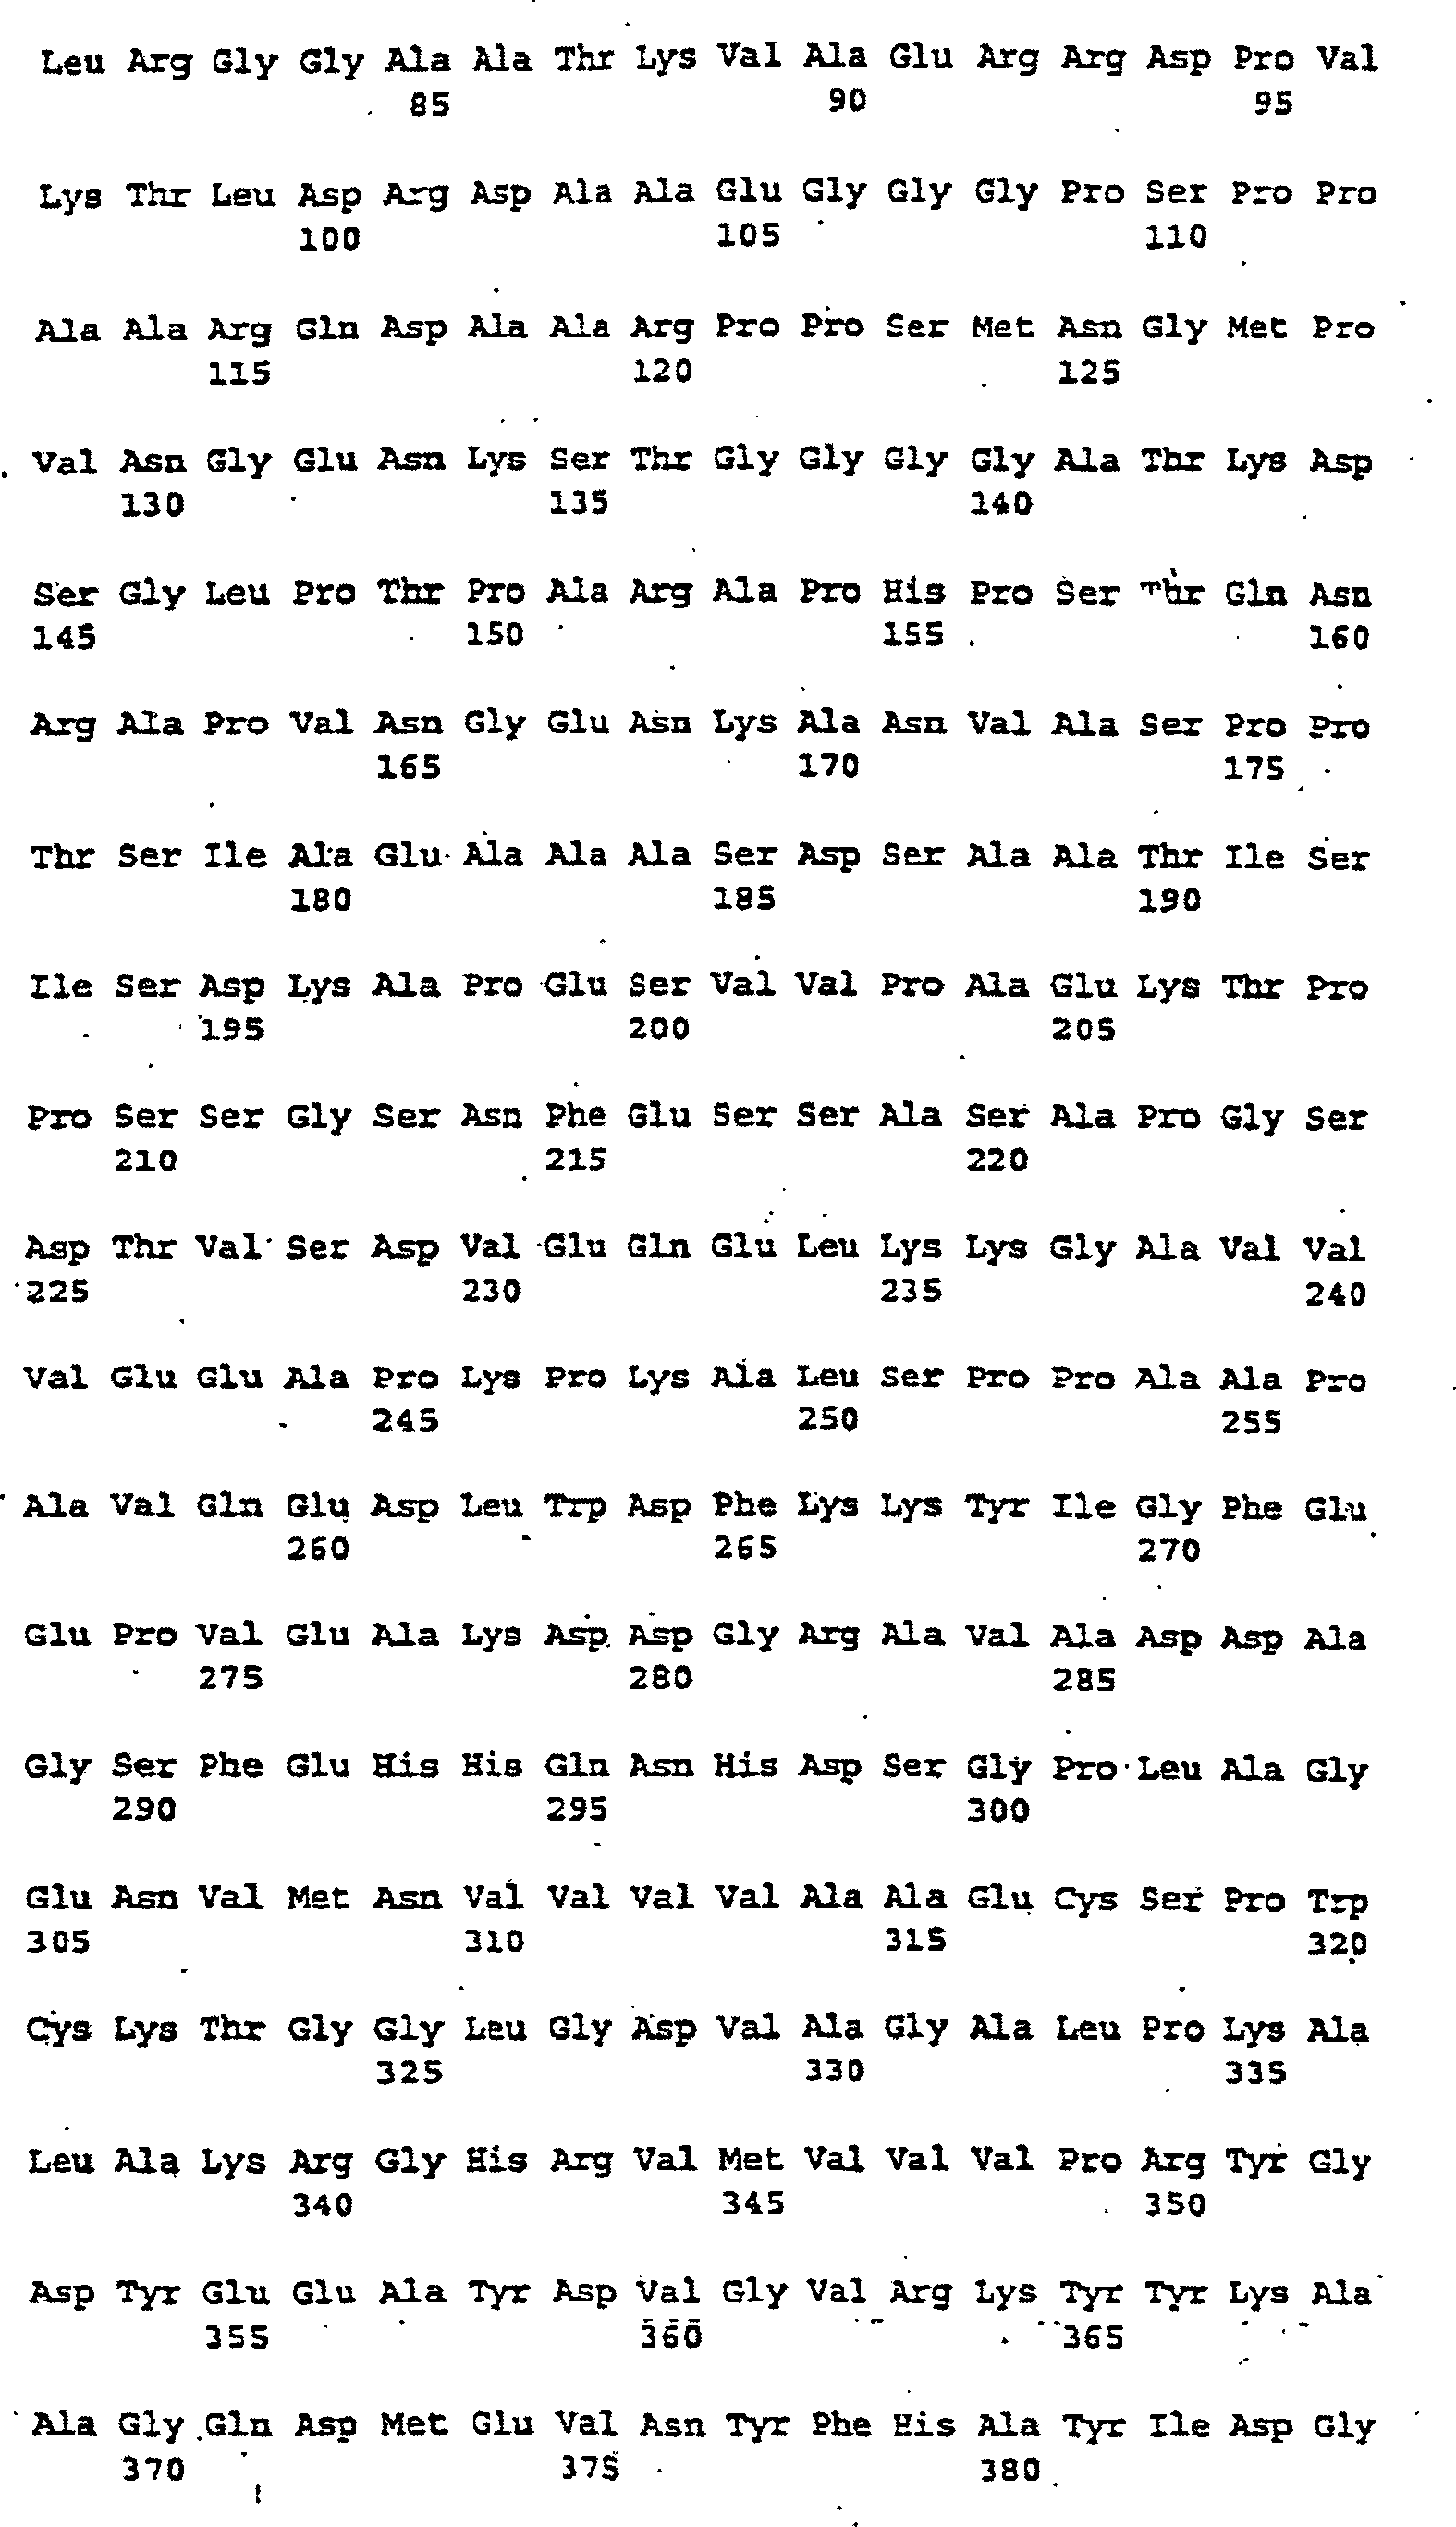
-

-

-
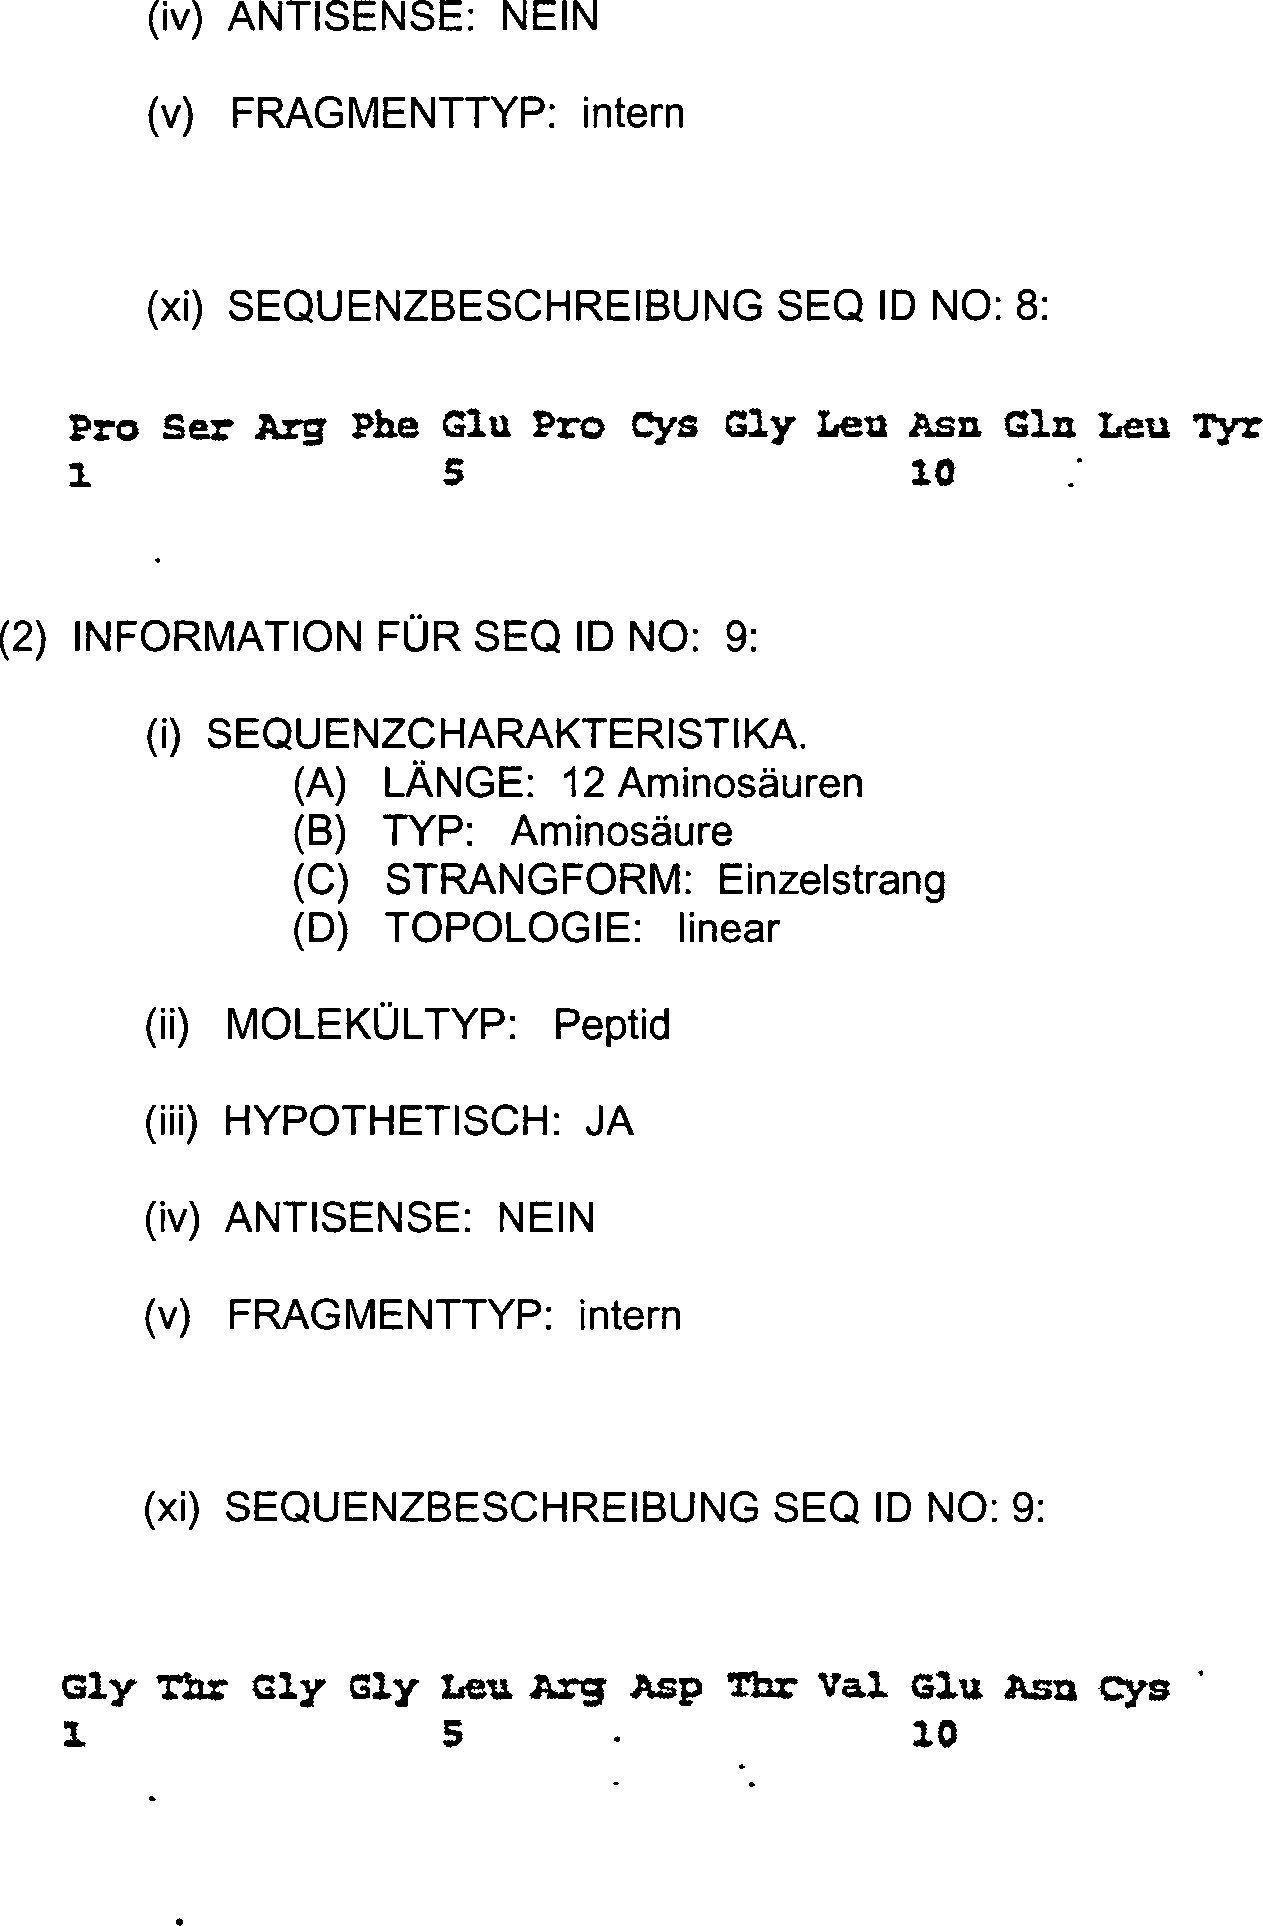
Claims (7)
- Pflanzenzelle von transgenem Weizen, dadurch gekennzeichnet, dass die Aktivität eines Proteins in dieser Pflanzenzelle reduziert ist, wobei das Protein codiert wird durch ein Nucleinsäuremolekül, welches eine Weizenstärkesynthase codiert, ausgewählt aus (a) Nucleinsäuremolekülen, die ein Protein codieren, das die Aminosäuresequenz der Reste 62 bis 671 wie in SEQ ID NO: 2 gezeigt umfasst; (b) Nucleinsäuremolekülen, umfassend die Nucleotidsequenz der Nucleotide 186 bis 2239 wie in SEQ ID NO: 1 gezeigt oder eine entsprechende Ribonucleotidsequenz; (c) Nucleinsäuremolekülen, deren Sequenz eine Sequenzidentität von mehr als 90% zu der Nucleotidsequenz der Nucleotide 186 bis 2239 wie in SEQ ID NO: 1 gezeigt hat, und welche eine lösliche Stärkesynthase codieren; und (d) Nucleinsäuremolekülen, deren Nucleotidsequenz durch die Degeneration des genetischen Codes von der Sequenz der Nucleinsäuremoleküle aufgeführt unter (c) abweicht, und wobei die Reduktion der Aktivität des Proteins in dieser Zelle erzielt wird durch (i) die Einführung und Expression eines DNA-Moleküls, welches eine Antisense-RNA gegen Transkripte eines DNA Moleküls gemäß der Definition in Anspruch 1 codiert, (ii) die Einführung und Expression eines DNA-Moleküls, das ein Ribozym codiert, welches speziell Transkripte schneidet, die das Polypeptid codieren; oder (iii) die Einführung und Expression eines DNA-Moleküls, das eine Sense-RNA für Transkripte eines DNA-Moleküls gemäß der Definition in Anspruch 1 codiert, zur Erzielung eines Cosuppressions-Effektes.
- Weizenpflanze, enthaltend Pflanzenzellen nach Anspruch 1.
- Vermehrungsmaterial einer Weizenpflanze nach Anspruch 2, enthaltend Zellen nach Anspruch 1.
- DNA-Molekül umfassend (a) eine DNA-Sequenz, die eine Antisense-RNA codiert, die komplementär ist zu Transkripten eines DNA-Moleküls gemäß der Definition in Anspruch 1, und (b) regulatorische DNA-Elemente, welche die Transkription der DNA-Sequenz in Pflanzenzellen sicherstellen, wobei die Expression des DNA-Moleküls in Weizenpflanzenzellen zu einer Reduktion der Expression einer Stärkesynthase in der Weizenpflanzenzelle führt, die durch ein Nucleinsäuremolekül gemäß der Definition in Anspruch 1 codiert wird.
- DNA-Molekül umfassend (a) eine DNA-Sequenz, die eine Sense-RNA zu Transkripten des DNA-Moleküls gemäß der Definition in Anspruch 1 codiert, und (b) regulatorische DNA-Elemente, welche eine Transkription der DNA-Sequenz in Pflanzenzellen sicherstellen, wobei die Expression des DNA-Moleküls in Weizenpflanzenzellen durch einen Cosuppressions-Effekt zu einer Reduktion der Expression einer Stärkesynthase in der Weizenpflanzenzelle führt, die durch ein Nucleinsäuremolekül gemäß der Definition in Anspruch 1 codiert wird.
- Verfahren zur Herstellung einer Pflanzenzelle von transgenem Weizen nach Anspruch 1, umfassend den Schritt des Transformierens einer Weizenpflanzenzelle mit einem DNA-Molekül nach Anspruch 4 oder 5.
- Verfahren zur Herstellung einer transgenen Weizenpflanze nach Anspruch 2, umfassend den Verfahrensschritt des Verfahrens nach Anspruch 6 und ferner den Schritt der Regeneration einer Pflanze aus der transformierten Weizenpflanzenzelle.
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| DE69737448T DE69737448T2 (de) | 1996-05-29 | 1997-05-28 | Nukleinsäuremoleküle, die für enzyme aus weizen kodieren, welche an der stärkesynthese beteiligt sind |
Applications Claiming Priority (6)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| DE19621588A DE19621588A1 (de) | 1996-05-29 | 1996-05-29 | Nucleinsäuremoleküle codierend Enzyme aus Weizen, die an der Stärkesynthese beteiligt sind |
| DE19621588 | 1996-05-29 | ||
| DE19636917 | 1996-09-11 | ||
| DE1996136917 DE19636917A1 (de) | 1996-09-11 | 1996-09-11 | Nucleinsäuremoleküle codierend Enzyme aus Weizen, die an der Stärkesynthese beteiligt sind |
| PCT/EP1997/002793 WO1997045545A1 (en) | 1996-05-29 | 1997-05-28 | Nucleic acid molecules encoding enzymes from wheat which are involved in starch synthesis |
| DE69737448T DE69737448T2 (de) | 1996-05-29 | 1997-05-28 | Nukleinsäuremoleküle, die für enzyme aus weizen kodieren, welche an der stärkesynthese beteiligt sind |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| DE69737448D1 DE69737448D1 (de) | 2007-04-19 |
| DE69737448T2 true DE69737448T2 (de) | 2007-11-15 |
Family
ID=26026138
Family Applications (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| DE69739979T Expired - Lifetime DE69739979D1 (de) | 1996-05-29 | 1997-05-28 | Nukleinsäuren, die für Enzyme aus Weizen kodieren, welche an der Stärkesynthese beteiligt sind |
| DE69737448T Expired - Lifetime DE69737448T2 (de) | 1996-05-29 | 1997-05-28 | Nukleinsäuremoleküle, die für enzyme aus weizen kodieren, welche an der stärkesynthese beteiligt sind |
Family Applications Before (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| DE69739979T Expired - Lifetime DE69739979D1 (de) | 1996-05-29 | 1997-05-28 | Nukleinsäuren, die für Enzyme aus Weizen kodieren, welche an der Stärkesynthese beteiligt sind |
Country Status (13)
| Country | Link |
|---|---|
| US (4) | US6307125B1 (de) |
| EP (2) | EP0907741B1 (de) |
| JP (3) | JP2001503964A (de) |
| CN (1) | CN1257978C (de) |
| AT (2) | ATE479759T1 (de) |
| AU (1) | AU737403B2 (de) |
| BR (1) | BR9709487A (de) |
| CA (2) | CA2624375C (de) |
| CZ (1) | CZ389098A3 (de) |
| DE (2) | DE69739979D1 (de) |
| IL (1) | IL127246A0 (de) |
| SK (1) | SK163698A3 (de) |
| WO (1) | WO1997045545A1 (de) |
Families Citing this family (225)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CA2624375C (en) * | 1996-05-29 | 2010-07-27 | Bayer Cropscience Gmbh | Nucleic acid molecules encoding enzymes from wheat which are involved in starch synthesis |
| WO1998014601A1 (en) * | 1996-09-30 | 1998-04-09 | Exseed Genetics L.L.C. | Encapsulation of polypeptides within the starch matrix |
| GB9705746D0 (en) * | 1997-03-20 | 1997-05-07 | Spp | Food rheology improvements |
| ATE417924T1 (de) * | 1997-09-12 | 2009-01-15 | Commw Scient Ind Res Org | Regulation der genexpression in pflanzen |
| DE19820607A1 (de) * | 1998-05-08 | 1999-11-11 | Hoechst Schering Agrevo Gmbh | Nucleinsäuremoleküle codierend Enzyme aus Weizen, die an der Stärkesynthese beteiligt sind |
| AU758890B2 (en) | 1998-06-15 | 2003-04-03 | National Starch And Chemical Investment Holding Corporation | Improvements in or relating to plants and plant products |
| US6392120B1 (en) | 1998-07-28 | 2002-05-21 | E. I. Du Pont De Nemours And Company | Modification of starch biosynthetic enzyme gene expression to produce starches in grain crops |
| DE19836098A1 (de) | 1998-07-31 | 2000-02-03 | Hoechst Schering Agrevo Gmbh | Pflanzen, die eine modifizierte Stärke synthetisieren, Verfahren zur Herstellung der Pflanzen, ihre Verwendung sowie die modifizierte Stärke |
| AUPQ005299A0 (en) | 1999-04-29 | 1999-05-27 | Commonwealth Scientific And Industrial Research Organisation | Novel genes encoding wheat starch synthases and uses therefor |
| AU780523B2 (en) * | 1999-04-29 | 2005-03-24 | Biogemma Sas | Novel genes encoding wheat starch synthases and uses therefor |
| FR2793806B1 (fr) * | 1999-05-21 | 2003-04-25 | Centre Nat Rech Scient | Grains d'amidon contenant un polypeptide recombinant d'interet, leur procede d'obtention, et leurs utilisations |
| DE19937643A1 (de) * | 1999-08-12 | 2001-02-22 | Aventis Cropscience Gmbh | Transgene Zellen und Pflanzen mit veränderter Aktivität des GBSSI- und des BE-Proteins |
| US6423886B1 (en) | 1999-09-02 | 2002-07-23 | Pioneer Hi-Bred International, Inc. | Starch synthase polynucleotides and their use in the production of new starches |
| DE50113063D1 (de) * | 2000-07-06 | 2007-11-08 | Bayer Cropscience Ag | Promotoren zur genexpression in karyopsen von pflanzen |
| DE10032379A1 (de) * | 2000-07-06 | 2002-01-17 | Aventis Cropscience Gmbh | Promotoren zur Genexpression in Karyopsen von Pflanzen |
| JP4565231B2 (ja) | 2000-08-22 | 2010-10-20 | 独立行政法人農業生物資源研究所 | 外来遺伝子産物を植物の種子中に高度に蓄積させる方法 |
| CA2416632C (en) | 2000-08-28 | 2012-01-24 | E.I. Du Pont De Nemours And Company | Novel starches produced by the expression of heterologous granule bound starch synthase genes |
| PT1331845E (pt) * | 2000-11-09 | 2012-04-12 | Commw Scient Ind Res Org | Cevada com reduzida atividade ssii e produtos contendo amido com um conteúdo de amilopectina reduzido |
| CA2384605A1 (en) * | 2001-05-03 | 2002-11-03 | E.I. Du Pont De Nemours And Company | Granule-bound starch synthase |
| AUPS219802A0 (en) * | 2002-05-09 | 2002-06-06 | Commonwealth Scientific And Industrial Research Organisation | Barley with altered branching enzyme activity and starch and starch containing products with a reduced amylopectin content |
| ATE517994T1 (de) | 2003-06-30 | 2011-08-15 | Commw Scient Ind Res Org | Weizen mit veränderter verzweigungsenzymaktivität sowie daraus erhaltene stärke und stärkehaltige produkte |
| US7790955B2 (en) | 2003-10-27 | 2010-09-07 | The Commonwealth Of Australia Commonwealth Scientific And Industrial Research Organisation | Rice and products thereof having starch with an increased proportion of amylose |
| US7993686B2 (en) * | 2004-12-30 | 2011-08-09 | Commonwealth Scientific And Industrial Organisation | Method and means for improving bowel health |
| US7700139B2 (en) * | 2004-12-30 | 2010-04-20 | Commonwealth Scientific And Industrial Research Organization | Method and means for improving bowel health |
| US20080201807A1 (en) * | 2005-02-11 | 2008-08-21 | Southern Cross University | Gelatinization Temperature Manipulation |
| EP1746163A1 (de) | 2005-07-22 | 2007-01-24 | Bayer CropScience GmbH | Überexpression von löslicher Stärkesynthase II in Pflanzen |
| EP1801152A1 (de) * | 2005-12-23 | 2007-06-27 | Bayer CropScience GmbH | Reisstärken mit verbesserten Qualitätseigenschaften |
| AR054174A1 (es) * | 2005-07-22 | 2007-06-06 | Bayer Cropscience Gmbh | Sobreexpresion de sintasa de almidon en vegetales |
| EP1887079A1 (de) * | 2006-08-09 | 2008-02-13 | Bayer CropScience AG | Genetisch modifizierte Pflanzen, die eine Stärke mit erhöhtem Quellvermögen synthetisieren |
| CL2007003744A1 (es) | 2006-12-22 | 2008-07-11 | Bayer Cropscience Ag | Composicion que comprende un derivado 2-piridilmetilbenzamida y un compuesto insecticida; y metodo para controlar de forma curativa o preventiva hongos fitopatogenos de cultivos e insectos. |
| CL2007003743A1 (es) * | 2006-12-22 | 2008-07-11 | Bayer Cropscience Ag | Composicion que comprende fenamidona y un compuesto insecticida; y metodo para controlar de forma curativa o preventiva hongos fitopatogenos de cultivos e insectos. |
| AR064558A1 (es) * | 2006-12-29 | 2009-04-08 | Bayer Cropscience Sa | Proceso para la modificacion de las propiedades termicas y de digestion de almidones de maiz y harinas de maiz |
| AR064557A1 (es) * | 2006-12-29 | 2009-04-08 | Bayer Cropscience Ag | Almidon de maiz y harinas y alimentos de maiz que comprenden este almidon de maiz |
| EP1950303A1 (de) * | 2007-01-26 | 2008-07-30 | Bayer CropScience AG | Genetisch modifizierte Pflanzen, die eine Stärke mit geringem Amylosegehalt und erhöhtem Quellvermögen synthetisieren |
| EP1969930A1 (de) | 2007-03-12 | 2008-09-17 | Bayer CropScience AG | Phenoxyphenylamidine und deren Verwendung als Fungizide |
| EP1969931A1 (de) * | 2007-03-12 | 2008-09-17 | Bayer CropScience Aktiengesellschaft | Fluoalkylphenylamidine und deren Verwendung als Fungizide |
| WO2008110280A2 (de) | 2007-03-12 | 2008-09-18 | Bayer Cropscience Ag | Phenoxy-substitutierte phenylamidin-derivativen und deren verwendung als fungiziden |
| BRPI0808786A2 (pt) | 2007-03-12 | 2014-09-16 | Bayer Cropscience Ag | Di-halogenofenoxifenilamidinas e seu uso como fungicidas |
| EP1969929A1 (de) | 2007-03-12 | 2008-09-17 | Bayer CropScience AG | Substituierte Phenylamidine und deren Verwendung als Fungizide |
| EP2120558B1 (de) | 2007-03-12 | 2016-02-10 | Bayer Intellectual Property GmbH | 3,4-Disubstituierte Phenoxyphenylamidin-Derivate und deren Verwendung als Fungizide |
| US8168567B2 (en) * | 2007-04-19 | 2012-05-01 | Bayer Cropscience Ag | Thiadiazolyl oxyphenyl amidines and the use thereof as a fungicide |
| DE102007045920B4 (de) | 2007-09-26 | 2018-07-05 | Bayer Intellectual Property Gmbh | Synergistische Wirkstoffkombinationen |
| DE102007045922A1 (de) | 2007-09-26 | 2009-04-02 | Bayer Cropscience Ag | Wirkstoffkombinationen mit insektiziden und akariziden Eigenschaften |
| DE102007045956A1 (de) | 2007-09-26 | 2009-04-09 | Bayer Cropscience Ag | Wirkstoffkombination mit insektiziden und akariziden Eigenschaften |
| DE102007045953B4 (de) | 2007-09-26 | 2018-07-05 | Bayer Intellectual Property Gmbh | Wirkstoffkombinationen mit insektiziden und akariziden Eigenschaften |
| DE102007045919B4 (de) | 2007-09-26 | 2018-07-05 | Bayer Intellectual Property Gmbh | Wirkstoffkombinationen mit insektiziden und akariziden Eigenschaften |
| EP2090168A1 (de) | 2008-02-12 | 2009-08-19 | Bayer CropScience AG | Methode zur Verbesserung des Pflanzenwachstums |
| EP2072506A1 (de) | 2007-12-21 | 2009-06-24 | Bayer CropScience AG | Thiazolyloxyphenylamidine oder Thiadiazolyloxyphenylamidine und deren Verwendung als Fungizide |
| EP2143797A1 (de) * | 2008-07-10 | 2010-01-13 | Bayer CropScience AG | Weizenstärke sowie Weizenmehle und Lebensmittel enthaltend diese Weizenstärke/Weizenmehle |
| CA2653883C (en) | 2008-07-17 | 2022-04-05 | Colin Leslie Dow Jenkins | High fructan cereal plants |
| EP2168434A1 (de) | 2008-08-02 | 2010-03-31 | Bayer CropScience AG | Verwendung von Azolen zur Steigerung der Resistenz von Pflanzen oder Pflanzenteilen gegenüber abiotischem Stress |
| US20110190365A1 (en) | 2008-08-14 | 2011-08-04 | Bayer Crop Science Ag | Insecticidal 4-phenyl-1H-pyrazoles |
| DE102008041695A1 (de) * | 2008-08-29 | 2010-03-04 | Bayer Cropscience Ag | Methoden zur Verbesserung des Pflanzenwachstums |
| EP2201838A1 (de) | 2008-12-05 | 2010-06-30 | Bayer CropScience AG | Wirkstoff-Nützlings-Kombinationen mit insektiziden und akariziden Eigenschaften |
| EP2198709A1 (de) | 2008-12-19 | 2010-06-23 | Bayer CropScience AG | Verfahren zur Bekämpfung resistenter tierischer Schädlinge |
| EP2223602A1 (de) | 2009-02-23 | 2010-09-01 | Bayer CropScience AG | Verfahren zur verbesserten Nutzung des Produktionspotentials genetisch modifizierter Pflanzen |
| EP2204094A1 (de) | 2008-12-29 | 2010-07-07 | Bayer CropScience AG | Verfahren zur verbesserten Verwendung des Herstellungspotentials von transgenen Pflanzen |
| CN102333445B (zh) | 2008-12-29 | 2014-09-03 | 拜尔农作物科学股份公司 | 改善利用转基因植物生产潜力的方法 |
| EP2039770A2 (de) | 2009-01-06 | 2009-03-25 | Bayer CropScience AG | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| EP2039771A2 (de) | 2009-01-06 | 2009-03-25 | Bayer CropScience AG | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| EP2039772A2 (de) | 2009-01-06 | 2009-03-25 | Bayer CropScience AG | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| CN102355820B (zh) | 2009-01-19 | 2013-10-16 | 拜尔农作物科学股份公司 | 环状二酮及其用作杀昆虫剂、杀螨剂和/或杀菌剂的用途 |
| EP2227951A1 (de) | 2009-01-23 | 2010-09-15 | Bayer CropScience AG | Verwendung von Enaminocarbonylverbindungen zur Bekämpfung von durch Insekten übertragenen Viren |
| BRPI1004930B1 (pt) | 2009-01-28 | 2017-10-17 | Bayer Intellectual Property Gmbh | Compounds, fungicidal composition and method for controlling phytopathogenic fungi of crops. |
| AR075126A1 (es) | 2009-01-29 | 2011-03-09 | Bayer Cropscience Ag | Metodo para el mejor uso del potencial de produccion de plantas transgenicas |
| EP2218717A1 (de) | 2009-02-17 | 2010-08-18 | Bayer CropScience AG | Fungizide N-((HET)Arylethyl)Thiocarboxamid-Derivative |
| JP5728735B2 (ja) | 2009-02-17 | 2015-06-03 | バイエル・インテレクチュアル・プロパティ・ゲゼルシャフト・ミット・ベシュレンクテル・ハフツングBayer Intellectual Property GmbH | 殺菌性n−(フェニルシクロアルキル)カルボキサミド、n−(ベンジルシクロアルキル)カルボキサミド及びチオカルボキサミド誘導体 |
| TW201031331A (en) | 2009-02-19 | 2010-09-01 | Bayer Cropscience Ag | Pesticide composition comprising a tetrazolyloxime derivative and a fungicide or an insecticide active substance |
| DE102009001469A1 (de) | 2009-03-11 | 2009-09-24 | Bayer Cropscience Ag | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| DE102009001681A1 (de) | 2009-03-20 | 2010-09-23 | Bayer Cropscience Ag | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| DE102009001728A1 (de) | 2009-03-23 | 2010-09-30 | Bayer Cropscience Ag | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| DE102009001730A1 (de) | 2009-03-23 | 2010-09-30 | Bayer Cropscience Ag | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| DE102009001732A1 (de) | 2009-03-23 | 2010-09-30 | Bayer Cropscience Ag | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| US8828906B2 (en) | 2009-03-25 | 2014-09-09 | Bayer Cropscience Ag | Active compound combinations having insecticidal and acaricidal properties |
| MX2011009830A (es) | 2009-03-25 | 2011-10-06 | Bayer Cropscience Ag | Combinaciones de principios activos con propiedades insecticidas y acaricidas. |
| US8846567B2 (en) | 2009-03-25 | 2014-09-30 | Bayer Cropscience Ag | Active compound combinations having insecticidal and acaricidal properties |
| EP2232995A1 (de) | 2009-03-25 | 2010-09-29 | Bayer CropScience AG | Verfahren zur verbesserten Nutzung des Produktionspotentials transgener Pflanzen |
| EP2410849A1 (de) | 2009-03-25 | 2012-02-01 | Bayer CropScience AG | Wirkstoffkombinationen mit insektiziden und akariziden eigenschaften |
| UA104887C2 (uk) | 2009-03-25 | 2014-03-25 | Баєр Кропсаєнс Аг | Синергічні комбінації активних речовин |
| EP2239331A1 (de) | 2009-04-07 | 2010-10-13 | Bayer CropScience AG | Verfahren zur verbesserten Verwendung des Herstellungspotentials von transgenen Pflanzen |
| CN102458125B (zh) | 2009-05-06 | 2015-04-29 | 拜尔农作物科学股份公司 | 环戊二酮化合物及其用作杀昆虫剂、杀螨剂和/或杀菌剂的用途 |
| AR076839A1 (es) | 2009-05-15 | 2011-07-13 | Bayer Cropscience Ag | Derivados fungicidas de pirazol carboxamidas |
| EP2251331A1 (de) | 2009-05-15 | 2010-11-17 | Bayer CropScience AG | Fungizide Pyrazolcarboxamid-Derivate |
| EP2255626A1 (de) | 2009-05-27 | 2010-12-01 | Bayer CropScience AG | Verwendung von Succinat Dehydrogenase Inhibitoren zur Steigerung der Resistenz von Pflanzen oder Pflanzenteilen gegenüber abiotischem Stress |
| HRP20190216T1 (hr) | 2009-06-02 | 2019-03-22 | Bayer Cropscience Aktiengesellschaft | Uporaba fluopirama za suzbijanje sclerotinia ssp |
| JP5642786B2 (ja) | 2009-07-16 | 2014-12-17 | バイエル・クロップサイエンス・アーゲーBayer Cropscience Ag | フェニルトリアゾール類を含む相乗的活性化合物組み合わせ |
| BR112012002114A2 (pt) | 2009-07-30 | 2015-09-15 | Australian Capital Ventures Ltd | cevadas e seu usos. |
| WO2011015524A2 (en) | 2009-08-03 | 2011-02-10 | Bayer Cropscience Ag | Fungicide heterocycles derivatives |
| EP2292094A1 (de) | 2009-09-02 | 2011-03-09 | Bayer CropScience AG | Wirkstoffkombinationen |
| EP2343280A1 (de) | 2009-12-10 | 2011-07-13 | Bayer CropScience AG | Fungizid-Chinolinderivate |
| CN102724879B (zh) | 2009-12-28 | 2015-10-21 | 拜尔农科股份公司 | 杀真菌剂肟基-四唑衍生物 |
| US9000012B2 (en) | 2009-12-28 | 2015-04-07 | Bayer Cropscience Ag | Fungicide hydroximoyl-heterocycles derivatives |
| US20130012546A1 (en) | 2009-12-28 | 2013-01-10 | Christian Beier | Fungicide hydroximoyl-tetrazole derivatives |
| NZ601341A (en) | 2010-01-22 | 2014-02-28 | Bayer Ip Gmbh | Acaricide and/or insecticide active substance combinations |
| AR080443A1 (es) | 2010-03-04 | 2012-04-11 | Bayer Cropscience Ag | 2-amidobencimidazoles sustituidos con fluruoalquilo |
| EP2555619A2 (de) | 2010-04-06 | 2013-02-13 | Bayer Intellectual Property GmbH | Verwendung der 4-phenylbuttersäure und/oder ihrer salze zur steigerung der stresstoleranz in pflanzen |
| JP6046604B2 (ja) | 2010-04-09 | 2016-12-21 | バイエル・インテレクチュアル・プロパティ・ゲゼルシャフト・ミット・ベシュレンクテル・ハフツングBayer Intellectual Property GmbH | 非生物的ストレスに対する植物の耐性を増強させるための(1−シアノシクロプロピル)フェニルホスフィン酸の誘導体、それらのエステル及び/又はそれらの塩の使用 |
| WO2011134911A2 (en) | 2010-04-28 | 2011-11-03 | Bayer Cropscience Ag | Fungicide hydroximoyl-tetrazole derivatives |
| WO2011134913A1 (en) | 2010-04-28 | 2011-11-03 | Bayer Cropscience Ag | Fungicide hydroximoyl-heterocycles derivatives |
| WO2011134912A1 (en) | 2010-04-28 | 2011-11-03 | Bayer Cropscience Ag | Fungicide hydroximoyl-heterocycles derivatives |
| KR20130109940A (ko) | 2010-06-03 | 2013-10-08 | 바이엘 크롭사이언스 아게 | N-[(헤트)아릴에틸] 피라졸(티오)카르복사미드 및 이의 헤테로치환된 유사체 |
| CA2796194A1 (en) | 2010-06-03 | 2011-12-08 | Bayer Cropscience Ag | N-[(het)arylalkyl)] pyrazole (thio)carboxamides and their heterosubstituted analogues |
| UA110703C2 (uk) | 2010-06-03 | 2016-02-10 | Байєр Кропсайнс Аг | Фунгіцидні похідні n-[(тризаміщений силіл)метил]-карбоксаміду |
| MX347575B (es) | 2010-06-09 | 2017-05-03 | Bayer Cropscience N V * | Metodos y medios para modificar un genoma vegetal en una secuencia de nucleotidos usada comunmente en la ingenieria genetica de genomas vegetales. |
| AU2011264074B2 (en) | 2010-06-09 | 2015-01-22 | Bayer Cropscience Nv | Methods and means to modify a plant genome at a nucleotide sequence commonly used in plant genome engineering |
| RU2013107369A (ru) | 2010-07-20 | 2014-08-27 | Байер Кропсайенс Аг | Бензоциклоалкеныв качестве противогрибковых средств |
| BR112013005223A2 (pt) | 2010-09-03 | 2016-05-03 | Bayer Ip Gmbh | "pirimidinonas e dihidropirimidinonas fusionadas substituídas." |
| BR112013006612A2 (pt) | 2010-09-22 | 2017-10-24 | Bayer Ip Gmbh | uso de agentes de controle biológico ou químico para controle de insetos e nematódeos em culturas resistentes |
| EP2460406A1 (de) | 2010-12-01 | 2012-06-06 | Bayer CropScience AG | Verwendung von Fluopyram zum Steuern von Nematoden in nematodresistentem Pflanzen |
| PL2624699T3 (pl) | 2010-10-07 | 2019-05-31 | Bayer Cropscience Ag | Kompozycja grzybobójcza zawierająca pochodną tetrazolilooksymu i pochodną tiazolilopiperydyny |
| BR112013009580B1 (pt) | 2010-10-21 | 2018-06-19 | Bayer Intellectual Property Gmbh | Composto de fómrula (i), composição fungicida e método para controlar fungos fitopatogênicos |
| EP2630135B1 (de) | 2010-10-21 | 2020-03-04 | Bayer Intellectual Property GmbH | 1-(heterocyclische carbonyl)-piperidine |
| CA2815117A1 (en) | 2010-11-02 | 2012-05-10 | Bayer Intellectual Property Gmbh | N-hetarylmethyl pyrazolylcarboxamides |
| NZ610181A (en) | 2010-11-04 | 2015-03-27 | Arista Cereal Technologies Pty Ltd | High amylose wheat |
| MX2013005410A (es) | 2010-11-15 | 2013-07-03 | Bayer Ip Gmbh | 5-halopirazol (tio)carboxamidas). |
| JP5833663B2 (ja) | 2010-11-15 | 2015-12-16 | バイエル・インテレクチュアル・プロパティ・ゲゼルシャフト・ミット・ベシュレンクテル・ハフツングBayer Intellectual Property GmbH | 5−ハロゲノピラゾールカルボキサミド類 |
| JP5860471B2 (ja) | 2010-11-15 | 2016-02-16 | バイエル・インテレクチュアル・プロパティ・ゲゼルシャフト・ミット・ベシュレンクテル・ハフツングBayer Intellectual Property GmbH | N−アリールピラゾール(チオ)カルボキサミド類 |
| JP6412311B2 (ja) | 2010-12-01 | 2018-10-24 | バイエル・インテレクチュアル・プロパティ・ゲゼルシャフト・ミット・ベシュレンクテル・ハフツングBayer Intellectual Property GmbH | 作物において線虫類を防除するための、及び、収量を増加させるための、フルオピラムの使用 |
| EP2460407A1 (de) | 2010-12-01 | 2012-06-06 | Bayer CropScience AG | Wirkstoffkombinationen umfassend Pyridylethylbenzamide und weitere Wirkstoffe |
| US20130289077A1 (en) | 2010-12-29 | 2013-10-31 | Juergen Benting | Fungicide hydroximoyl-tetrazole derivatives |
| EP2474542A1 (de) | 2010-12-29 | 2012-07-11 | Bayer CropScience AG | Fungizide Hydroximoyl-Tetrazol-Derivate |
| EP2471363A1 (de) | 2010-12-30 | 2012-07-04 | Bayer CropScience AG | Verwendung von Aryl-, Heteroaryl- und Benzylsulfonamidocarbonsäuren, -carbonsäureestern, -carbonsäureamiden und -carbonitrilen oder deren Salze zur Steigerung der Stresstoleranz in Pflanzen |
| WO2012103594A1 (en) | 2011-02-03 | 2012-08-09 | Commonwealth Scientific And Industrial Research Organisation | Barley with modified ssiii |
| EP2494867A1 (de) | 2011-03-01 | 2012-09-05 | Bayer CropScience AG | Halogen-substituierte Verbindungen in Kombination mit Fungiziden |
| JP2014513061A (ja) | 2011-03-10 | 2014-05-29 | バイエル・インテレクチユアル・プロパテイー・ゲー・エム・ベー・ハー | 処理された種子の種子安全性を保護するためのリポキト−オリゴ糖化合物の使用 |
| BR112013023502A2 (pt) | 2011-03-14 | 2016-08-02 | Bayer Ip Gmbh | composto fórmula (i), composição fungicida, método para o controle de fungos fitopatogênicos de culturas, utilização dos compostos de fórmula (i) e processo para a produção das composições |
| WO2012136581A1 (en) | 2011-04-08 | 2012-10-11 | Bayer Cropscience Ag | Fungicide hydroximoyl-tetrazole derivatives |
| AR090010A1 (es) | 2011-04-15 | 2014-10-15 | Bayer Cropscience Ag | 5-(ciclohex-2-en-1-il)-penta-2,4-dienos y 5-(ciclohex-2-en-1-il)-pent-2-en-4-inos sustituidos como principios activos contra el estres abiotico de las plantas, usos y metodos de tratamiento |
| AR085568A1 (es) | 2011-04-15 | 2013-10-09 | Bayer Cropscience Ag | 5-(biciclo[4.1.0]hept-3-en-2-il)-penta-2,4-dienos y 5-(biciclo[4.1.0]hept-3-en-2-il)-pent-2-en-4-inos sustituidos como principios activos contra el estres abiotico de las plantas |
| AR085585A1 (es) | 2011-04-15 | 2013-10-09 | Bayer Cropscience Ag | Vinil- y alquinilciclohexanoles sustituidos como principios activos contra estres abiotico de plantas |
| EP2511255A1 (de) | 2011-04-15 | 2012-10-17 | Bayer CropScience AG | Substituierte Prop-2-in-1-ol- und Prop-2-en-1-ol-Derivate |
| ES2561296T3 (es) | 2011-04-22 | 2016-02-25 | Bayer Intellectual Property Gmbh | Combinaciones de un compuesto activo que comprenden un derivado de carboximida y un compuesto fungicida |
| WO2012168124A1 (en) | 2011-06-06 | 2012-12-13 | Bayer Cropscience Nv | Methods and means to modify a plant genome at a preselected site |
| BR112014000267A2 (pt) | 2011-07-04 | 2016-09-20 | Bayer Ip Gmbh | utilização de isoquinolinonas, isoquinolinedionas, isoquinolinetrionas e dihidroisoquinolinonas substituídas ou, em cada caso, sais das mesmas como agentes ativos contra o stress abiótico em plantas |
| CN103717076B (zh) | 2011-08-10 | 2016-04-13 | 拜耳知识产权股份有限公司 | 含有特定特特拉姆酸衍生物的活性化合物组合物 |
| WO2013026836A1 (en) | 2011-08-22 | 2013-02-28 | Bayer Intellectual Property Gmbh | Fungicide hydroximoyl-tetrazole derivatives |
| BR112014003919A2 (pt) | 2011-08-22 | 2017-03-14 | Bayer Cropscience Ag | métodos e meios para modificar um genoma de planta |
| EP2561759A1 (de) | 2011-08-26 | 2013-02-27 | Bayer Cropscience AG | Fluoralkyl-substituierte 2-amidobenzimidazole und ihre Wirkung auf das Pflanzenwachstum |
| BR112014005262A2 (pt) | 2011-09-09 | 2017-04-04 | Bayer Ip Gmbh | método para aprimorar um vegetal e utilização de um composto de fórmula (i) ou (ii) |
| US9090600B2 (en) | 2011-09-12 | 2015-07-28 | Bayer Intellectual Property Gmbh | Fungicidal 4-substituted-3-{phenyl[(heterocyclylmethoxy)imino]methyl}-1,2,4-oxadizol-5(4H)-one derivatives |
| CN107897194A (zh) | 2011-09-16 | 2018-04-13 | 拜耳知识产权有限责任公司 | 5‑苯基‑或5‑苄基‑2‑异噁唑啉‑3‑甲酸酯用于改善植物产量的用途 |
| CN103781352A (zh) | 2011-09-16 | 2014-05-07 | 拜耳知识产权有限责任公司 | 苯基吡唑啉-3-甲酸酯类用于提高植物产量的用途 |
| BR112014006217B1 (pt) | 2011-09-16 | 2019-01-15 | Bayer Intellectual Property Gmbh | utilização de acilsulfonamidas para melhorar o rendimento de plantas,método para induzir respostas de regulação de crescimento em plantas úteis ou plantas de cultura e composição. |
| EP2757886A1 (de) | 2011-09-23 | 2014-07-30 | Bayer Intellectual Property GmbH | Verwendung 4-substituierter 1-phenyl-pyrazol-3-carbonsäurederivate als wirkstoffe gegen abiotischen pflanzenstress |
| UA115132C2 (uk) | 2011-10-04 | 2017-09-25 | Байєр Інтелекчуал Проперті Гмбх | Спосіб боротьби з грибами та ооміцетами шляхом інгібування гена сахаропіндегідрогенази |
| EP3539372B1 (de) | 2011-10-04 | 2023-12-06 | Arcadia Biosciences Inc. | Weizen mit erhöhtem gehalt an resistenter stärke |
| WO2013050324A1 (de) | 2011-10-06 | 2013-04-11 | Bayer Intellectual Property Gmbh | Abiotischen pflanzenstress-reduzierende kombination enthaltend 4- phenylbuttersäure (4-pba) oder eines ihrer salze (komponente (a)) und eine oder mehrere ausgewählte weitere agronomisch wirksame verbindungen (komponente(n) (b) |
| EP2773183B1 (de) | 2011-11-04 | 2024-10-09 | Arista Cereal Technologies Pty Ltd | Weizen mit hohem amylosegehalt - ii |
| RU2014125077A (ru) | 2011-11-21 | 2015-12-27 | Байер Интеллекчуал Проперти Гмбх | Фунгицидные n-[(тризамещенный силил)этил]-карбоксамидные производные |
| AR089656A1 (es) | 2011-11-30 | 2014-09-10 | Bayer Ip Gmbh | Derivados de n-bicicloalquil- y n-tricicloalquil-(tio)-carboxamida fungicidas |
| CN104270946B (zh) | 2011-12-19 | 2017-05-10 | 拜耳农作物科学股份公司 | 邻氨基苯甲酸二酰胺衍生物用于防治转基因作物中的害虫的用途 |
| MX343871B (es) | 2011-12-29 | 2016-11-25 | Bayer Ip Gmbh | Derivados de 3-[(piridin-2-ilmetoxiimino)(fenil)metil]-2-sustituid o-1,2,4-oxadiazol-5(2h)-ona fungicidas. |
| WO2013098146A1 (en) | 2011-12-29 | 2013-07-04 | Bayer Intellectual Property Gmbh | Fungicidal 3-[(1,3-thiazol-4-ylmethoxyimino)(phenyl)methyl]-2-substituted-1,2,4-oxadiazol-5(2h)-one derivatives |
| HUE036328T2 (hu) | 2012-02-22 | 2018-06-28 | Bayer Cropscience Ag | Fluopirám alkalmazása fabetegségek leküzdésére szõlõn |
| AP2014007876A0 (en) | 2012-02-27 | 2014-08-31 | Bayer Ip Gmbh | Active compound combinations containing a thiazoylisoxazoline and a fungicide |
| WO2013139949A1 (en) | 2012-03-23 | 2013-09-26 | Bayer Intellectual Property Gmbh | Compositions comprising a strigolactame compound for enhanced plant growth and yield |
| CN104245687B (zh) | 2012-04-12 | 2016-12-14 | 拜尔农科股份公司 | 作为杀真菌剂的n-酰基-2-(环)烷基吡咯烷和哌啶 |
| KR102062517B1 (ko) | 2012-04-20 | 2020-01-06 | 바이엘 크롭사이언스 악티엔게젤샤프트 | N-시클로알킬-n-[(헤테로시클릴페닐)메틸렌]-(티오)카르복사미드 유도체 |
| JP2015516396A (ja) | 2012-04-20 | 2015-06-11 | バイエル・クロップサイエンス・アーゲーBayer Cropscience Ag | N−シクロアルキル−n−[(三置換シリルフェニル)メチレン]−(チオ)カルボキサミド誘導体 |
| CA2871008C (en) | 2012-04-23 | 2022-11-22 | Bayer Cropscience Nv | Targeted genome engineering in plants |
| US9249104B2 (en) | 2012-05-09 | 2016-02-02 | Bayer Cropscience Ag | Pyrazole indanyl carboxamides |
| EP2662362A1 (de) | 2012-05-09 | 2013-11-13 | Bayer CropScience AG | Pyrazol-Indanyl-Carboxamide |
| BR112014027644A2 (pt) | 2012-05-09 | 2017-06-27 | Bayer Cropscience Ag | 5-halogenopirazol-indanil-carboxamidas |
| EP2662360A1 (de) | 2012-05-09 | 2013-11-13 | Bayer CropScience AG | 5-Halogenpyrazol-Indanyl-Carboxamide |
| EP2662363A1 (de) | 2012-05-09 | 2013-11-13 | Bayer CropScience AG | 5-Halogenpyrazol-Biphenyl-Carboxamide |
| EP2662361A1 (de) | 2012-05-09 | 2013-11-13 | Bayer CropScience AG | Pyrazol-Indanyl-Carboxamide |
| EP2662370A1 (de) | 2012-05-09 | 2013-11-13 | Bayer CropScience AG | 5-Halogenpyrazol-Benzofuranyl-Carboxamide |
| EP2662364A1 (de) | 2012-05-09 | 2013-11-13 | Bayer CropScience AG | Pyrazol-Tetrahydronaphthyl-Carboxamide |
| AR091104A1 (es) | 2012-05-22 | 2015-01-14 | Bayer Cropscience Ag | Combinaciones de compuestos activos que comprenden un derivado lipo-quitooligosacarido y un compuesto nematicida, insecticida o fungicida |
| WO2014009322A1 (en) | 2012-07-11 | 2014-01-16 | Bayer Cropscience Ag | Use of fungicidal combinations for increasing the tolerance of a plant towards abiotic stress |
| WO2014037340A1 (de) | 2012-09-05 | 2014-03-13 | Bayer Cropscience Ag | Verwendung substituierter 2-amidobenzimidazole, 2-amidobenzoxazole und 2-amidobenzothiazole oder deren salze als wirkstoffe gegen abiotischen pflanzenstress |
| CA2888559C (en) | 2012-10-19 | 2021-03-02 | Bayer Cropscience Ag | Method for enhancing tolerance to abiotic stress in plants using carboxamide or thiocarboxamide derivatives |
| MX380476B (es) | 2012-10-19 | 2025-03-12 | Bayer Cropscience Ag | Método de promoción de crecimiento de planta usando derivados de carboxamida. |
| CA2888600C (en) | 2012-10-19 | 2021-08-10 | Bayer Cropscience Ag | Active compound combinations comprising carboxamide derivatives |
| AU2013333847B2 (en) | 2012-10-19 | 2017-04-20 | Bayer Cropscience Ag | Method for treating plants against fungi resistant to fungicides using carboxamide or thiocarboxamide derivatives |
| JP2015532124A (ja) | 2012-10-23 | 2015-11-09 | モンタナ ステート ユニバーシティ | アミロース含量が増加した高品質デュラムコムギの生成 |
| EP2735231A1 (de) | 2012-11-23 | 2014-05-28 | Bayer CropScience AG | Wirkstoffkombinationen |
| WO2014079957A1 (de) | 2012-11-23 | 2014-05-30 | Bayer Cropscience Ag | Selektive inhibition der ethylensignaltransduktion |
| UA116223C2 (uk) | 2012-11-30 | 2018-02-26 | Байєр Кропсайєнс Акцієнгезелльшафт | Подвійна фунгіцидна суміш |
| WO2014083089A1 (en) | 2012-11-30 | 2014-06-05 | Bayer Cropscience Ag | Ternary fungicidal and pesticidal mixtures |
| BR122020019349B1 (pt) | 2012-11-30 | 2021-05-11 | Bayer Cropscience Ag | composição, seu processo de preparação, método para controlar um ou mais microrganismos nocivos, semente resistente a microorganismos nocivos e seu método de tratamento |
| BR112015012054A2 (pt) | 2012-11-30 | 2017-07-11 | Bayer Cropscience Ag | mistura fungicida ou pesticida binária |
| UA117819C2 (uk) | 2012-11-30 | 2018-10-10 | Байєр Кропсайєнс Акцієнгезелльшафт | Подвійні пестицидні і фунгіцидні суміші |
| US20150305334A1 (en) | 2012-12-05 | 2015-10-29 | Bayer Cropscience Ag | Use of substituted 1-(aryl ethynyl)-, 1-(heteroaryl ethynyl)-, 1-(heterocyclyl ethynyl)- and 1-(cycloalkenyl ethynyl)-cyclohexanols as active agents against abiotic plant stress |
| EP2740356A1 (de) | 2012-12-05 | 2014-06-11 | Bayer CropScience AG | Substituierte (2Z)-5(1-Hydroxycyclohexyl)pent-2-en-4-insäure-Derivate |
| EP2740720A1 (de) | 2012-12-05 | 2014-06-11 | Bayer CropScience AG | Substituierte bicyclische- und tricyclische Pent-2-en-4-insäure -Derivate und ihre Verwendung zur Steigerung der Stresstoleranz in Pflanzen |
| WO2014090765A1 (en) | 2012-12-12 | 2014-06-19 | Bayer Cropscience Ag | Use of 1-[2-fluoro-4-methyl-5-(2,2,2-trifluoroethylsulfinyl)phenyl]-5-amino-3-trifluoromethyl)-1 h-1,2,4 tfia zole for controlling nematodes in nematode-resistant crops |
| AR093996A1 (es) | 2012-12-18 | 2015-07-01 | Bayer Cropscience Ag | Combinaciones bactericidas y fungicidas binarias |
| US9428459B2 (en) | 2012-12-19 | 2016-08-30 | Bayer Cropscience Ag | Difluoromethyl-nicotinic- tetrahydronaphtyl carboxamides |
| TW201446759A (zh) | 2013-03-07 | 2014-12-16 | Bayer Cropscience Ag | 殺真菌之3-{苯基[(雜環基甲氧基)亞胺]甲基}-雜環衍生物 |
| CN105121650A (zh) | 2013-04-02 | 2015-12-02 | 拜尔作物科学公司 | 真核生物中的靶向基因组工程 |
| EP2984080B1 (de) | 2013-04-12 | 2017-08-30 | Bayer CropScience Aktiengesellschaft | Neuartige triazolderivate |
| WO2014167009A1 (en) | 2013-04-12 | 2014-10-16 | Bayer Cropscience Ag | Novel triazole derivatives |
| CN105307492B (zh) | 2013-04-19 | 2018-03-30 | 拜耳作物科学股份公司 | 二元杀虫或除虫混合物 |
| WO2014170345A2 (en) | 2013-04-19 | 2014-10-23 | Bayer Cropscience Ag | Method for improved utilization of the production potential of transgenic plants |
| WO2014177514A1 (en) | 2013-04-30 | 2014-11-06 | Bayer Cropscience Ag | Nematicidal n-substituted phenethylcarboxamides |
| TW201507722A (zh) | 2013-04-30 | 2015-03-01 | Bayer Cropscience Ag | 做為殺線蟲劑及殺體內寄生蟲劑的n-(2-鹵素-2-苯乙基)-羧醯胺類 |
| US9770022B2 (en) | 2013-06-26 | 2017-09-26 | Bayer Cropscience Ag | N-cycloalkyl-N-[(bicyclylphenyl)methylene]-(thio)carboxamide derivatives |
| EP3019012A1 (de) | 2013-07-09 | 2016-05-18 | Bayer CropScience AG | Verwendung ausgewählter pyridoncarboxamide oder deren salzen als wirkstoffe gegen abiotischen pflanzenstress |
| EP3077377B1 (de) | 2013-12-05 | 2020-01-22 | Bayer CropScience Aktiengesellschaft | N-cycloalkyl-n-{[2-(1-cycloalkylsubstituierten)phenyl]methylene}-(thio)carboxamide derivativen |
| TW201609661A (zh) | 2013-12-05 | 2016-03-16 | 拜耳作物科學公司 | N-環烷基-n-{[2-(1-經取代環烷基)苯基]亞甲基}-(硫代)甲醯胺衍生物 |
| AR101214A1 (es) | 2014-07-22 | 2016-11-30 | Bayer Cropscience Ag | Ciano-cicloalquilpenta-2,4-dienos, ciano-cicloalquilpent-2-en-4-inas, ciano-heterociclilpenta-2,4-dienos y ciano-heterociclilpent-2-en-4-inas sustituidos como principios activos contra el estrés abiótico de plantas |
| AR103024A1 (es) | 2014-12-18 | 2017-04-12 | Bayer Cropscience Ag | Piridoncarboxamidas seleccionadas o sus sales como sustancias activas contra estrés abiótico de las plantas |
| CN104673923B (zh) * | 2015-02-15 | 2016-10-05 | 中国农业科学院作物科学研究所 | 用于小麦淀粉合酶基因TaSSIV等位变异检测的引物SSIV-1b及其检测方法 |
| WO2016166077A1 (en) | 2015-04-13 | 2016-10-20 | Bayer Cropscience Aktiengesellschaft | N-cycloalkyl-n-(biheterocyclyethylene)-(thio)carboxamide derivatives |
| AU2016279062A1 (en) | 2015-06-18 | 2019-03-28 | Omar O. Abudayyeh | Novel CRISPR enzymes and systems |
| CA2990240A1 (en) * | 2015-07-09 | 2017-01-12 | Montana State University | Cereal seed starch synthase ii alleles and their uses |
| EP3490379A1 (de) | 2016-07-29 | 2019-06-05 | Bayer CropScience Aktiengesellschaft | Wirkstoffkombinationen und verfahren zum schutz des vermehrungsmaterials von pflanzen |
| BR112019005668A2 (pt) | 2016-09-22 | 2019-06-04 | Bayer Ag | novos derivados de triazol |
| BR112019005660A2 (pt) | 2016-09-22 | 2019-06-04 | Bayer Cropscience Ag | novos derivados de triazol e seu uso como fungicidas |
| US20190225974A1 (en) | 2016-09-23 | 2019-07-25 | BASF Agricultural Solutions Seed US LLC | Targeted genome optimization in plants |
| US12499971B2 (en) | 2016-09-28 | 2025-12-16 | The Broad Institute, Inc. | Systematic screening and mapping of regulatory elements in non-coding genomic regions, methods, compositions, and applications thereof |
| RU2019115286A (ru) | 2016-10-26 | 2020-11-27 | Байер Кропсайенс Акциенгезельшафт | Применение ниразифлумида для борьбы с sclerotinia spp при обработке семян |
| JP2020500905A (ja) | 2016-12-08 | 2020-01-16 | バイエル・クロップサイエンス・アクチェンゲゼルシャフト | ハリガネムシを防除するための殺虫剤の使用 |
| EP3332645A1 (de) | 2016-12-12 | 2018-06-13 | Bayer Cropscience AG | Verwendung substituierter pyrimidindione oder jeweils deren salze als wirkstoffe gegen abiotischen pflanzenstress |
| WO2018108627A1 (de) | 2016-12-12 | 2018-06-21 | Bayer Cropscience Aktiengesellschaft | Verwendung substituierter indolinylmethylsulfonamide oder deren salze zur steigerung der stresstoleranz in pflanzen |
| US11591601B2 (en) | 2017-05-05 | 2023-02-28 | The Broad Institute, Inc. | Methods for identification and modification of lncRNA associated with target genotypes and phenotypes |
| EP3625342B1 (de) | 2017-05-18 | 2022-08-24 | The Broad Institute, Inc. | Systeme, verfahren und zusammensetzungen zur gezielten nukleinsäureeditierung |
| WO2019025153A1 (de) | 2017-07-31 | 2019-02-07 | Bayer Cropscience Aktiengesellschaft | Verwendung von substituierten n-sulfonyl-n'-aryldiaminoalkanen und n-sulfonyl-n'-heteroaryldiaminoalkanen oder deren salzen zur steigerung der stresstoleranz in pflanzen |
| KR102338449B1 (ko) | 2017-09-21 | 2021-12-10 | 더 브로드 인스티튜트, 인코퍼레이티드 | 표적화된 핵산 편집을 위한 시스템, 방법, 및 조성물 |
| US20230193242A1 (en) | 2017-12-22 | 2023-06-22 | The Broad Institute, Inc. | Cas12b systems, methods, and compositions for targeted dna base editing |
| US10968257B2 (en) | 2018-04-03 | 2021-04-06 | The Broad Institute, Inc. | Target recognition motifs and uses thereof |
| CN108753915A (zh) * | 2018-05-12 | 2018-11-06 | 内蒙古农业大学 | 谷子酶活性的测定方法 |
| CN112513033A (zh) | 2018-06-04 | 2021-03-16 | 拜耳公司 | 除草活性的双环苯甲酰基吡唑 |
| WO2020131862A1 (en) | 2018-12-17 | 2020-06-25 | The Broad Institute, Inc. | Crispr-associated transposase systems and methods of use thereof |
Family Cites Families (12)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| NL8300698A (nl) | 1983-02-24 | 1984-09-17 | Univ Leiden | Werkwijze voor het inbouwen van vreemd dna in het genoom van tweezaadlobbige planten; agrobacterium tumefaciens bacterien en werkwijze voor het produceren daarvan; planten en plantecellen met gewijzigde genetische eigenschappen; werkwijze voor het bereiden van chemische en/of farmaceutische produkten. |
| CN1008106B (zh) | 1986-08-09 | 1990-05-23 | 新疆石河子农学院 | 淀粉粘合剂的制作方法 |
| US5349123A (en) * | 1990-12-21 | 1994-09-20 | Calgene, Inc. | Glycogen biosynthetic enzymes in plants |
| SE467358B (sv) | 1990-12-21 | 1992-07-06 | Amylogene Hb | Genteknisk foeraendring av potatis foer bildning av staerkelse av amylopektintyp |
| GB9112645D0 (en) * | 1991-06-12 | 1991-07-31 | Cambridge Advanced Tech | Modification of starch production |
| JP3495749B2 (ja) * | 1992-07-07 | 2004-02-09 | 三井化学株式会社 | 可溶性のイネ澱粉合成酵素遺伝子及びその使用法 |
| US5824790A (en) * | 1994-06-21 | 1998-10-20 | Zeneca Limited | Modification of starch synthesis in plants |
| DE4441408A1 (de) * | 1994-11-10 | 1996-05-15 | Inst Genbiologische Forschung | DNA-Sequenzen aus Solanum tuberosum kodierend Enzyme, die an der Stärkesynthese beteiligt sind, Plasmide, Bakterien, Pflanzenzellen und transgene Pflanzen enhaltend diese Sequenzen |
| GB9524938D0 (en) * | 1995-12-06 | 1996-02-07 | Zeneca Ltd | Modification of starch synthesis in plants |
| DE19601365A1 (de) | 1996-01-16 | 1997-07-17 | Planttec Biotechnologie Gmbh | Nucleinsäuremoleküle aus Pflanzen codierend Enzyme, die an der Stärkesynthese beteiligt sind |
| DE19619918A1 (de) * | 1996-05-17 | 1997-11-20 | Planttec Biotechnologie Gmbh | Nucleinsäuremoleküle codierend lösliche Stärkesynthasen aus Mais |
| CA2624375C (en) * | 1996-05-29 | 2010-07-27 | Bayer Cropscience Gmbh | Nucleic acid molecules encoding enzymes from wheat which are involved in starch synthesis |
-
1997
- 1997-05-28 CA CA2624375A patent/CA2624375C/en not_active Expired - Lifetime
- 1997-05-28 CN CNB971950040A patent/CN1257978C/zh not_active Expired - Lifetime
- 1997-05-28 DE DE69739979T patent/DE69739979D1/de not_active Expired - Lifetime
- 1997-05-28 AU AU30302/97A patent/AU737403B2/en not_active Expired
- 1997-05-28 JP JP54161997A patent/JP2001503964A/ja not_active Withdrawn
- 1997-05-28 AT AT06004330T patent/ATE479759T1/de not_active IP Right Cessation
- 1997-05-28 CZ CZ983890A patent/CZ389098A3/cs unknown
- 1997-05-28 SK SK1636-98A patent/SK163698A3/sk unknown
- 1997-05-28 AT AT97925013T patent/ATE356211T1/de not_active IP Right Cessation
- 1997-05-28 DE DE69737448T patent/DE69737448T2/de not_active Expired - Lifetime
- 1997-05-28 BR BR9709487A patent/BR9709487A/pt not_active Application Discontinuation
- 1997-05-28 CA CA2256461A patent/CA2256461C/en not_active Expired - Lifetime
- 1997-05-28 IL IL12724697A patent/IL127246A0/xx unknown
- 1997-05-28 EP EP97925013A patent/EP0907741B1/de not_active Expired - Lifetime
- 1997-05-28 EP EP06004330A patent/EP1681352B1/de not_active Expired - Lifetime
- 1997-05-28 WO PCT/EP1997/002793 patent/WO1997045545A1/en not_active Ceased
-
1998
- 1998-11-19 US US09/196,390 patent/US6307125B1/en not_active Expired - Lifetime
-
2001
- 2001-09-14 US US09/952,677 patent/US6734339B2/en not_active Expired - Lifetime
-
2004
- 2004-04-05 US US10/818,624 patent/US7365189B2/en not_active Expired - Fee Related
-
2007
- 2007-10-26 JP JP2007279031A patent/JP4384216B2/ja not_active Expired - Fee Related
- 2007-10-26 JP JP2007279004A patent/JP4384215B2/ja not_active Expired - Fee Related
-
2008
- 2008-01-11 US US12/008,631 patent/US7888065B2/en not_active Expired - Fee Related
Also Published As
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| EP0874908B1 (de) | Nucleinsäuremoleküle aus pflanzen codierend enzyme, die an der stärkesynthese beteiligt sind | |
| EP0791066B1 (de) | Dna-moleküle codierend enzyme, die an der stärkesynthese beteiligt sind, vektoren, bakterien, transgene pflanzenzellen und pflanzen enthaltend diese moleküle | |
| EP1200615B8 (de) | Nukleinsäuremoleküle aus pflanzen codierend enzyme, die an der stärkesynthese beteiligt sind | |
| EP1088082B1 (de) | Nucleinsäuremoleküle codierend enzyme aus weizen, die an der stärkesynthese beteiligt sind | |
| US7888065B2 (en) | Nucleic acid molecules encoding enzymes from wheat which are involved in starch synthesis | |
| US6635804B2 (en) | Nucleic acid molecules encoding soluble starch synthases from maize | |
| EP1095152A2 (de) | Nucleinsäuremoleküle codierend enzyme aus weizen, die an der stärkesynthese beteiligt sind | |
| DE19709775A1 (de) | Nucleinsäuremoleküle codierend Stärkephosphorylase aus Mais | |
| EP1100939A1 (de) | Nukleinsäuremoleküle kodierend für beta-amylase, pflanzen, die eine modifizierte stärke synthetisieren, herstellungsverfahren und verwendungen | |
| EP1100931A2 (de) | NUKLEINSÄUREMOLEKÜLE KODIEREND FÜR EINE $g(a)-GLUKOSIDASE, PFLANZEN, DIE EINE MODIFIZIERTE STÄRKE SYNTHETISIEREN, VERFAHREN ZUR HERSTELLUNG DER PFLANZEN, IHRE VERWENDUNG SOWIE DIE MODIFIZIERTE STÄRKE | |
| EP1100937A1 (de) | Pflanzen, die eine modifizierte stärke synthetisieren, verfahren zur herstellung der pflanzen, ihre verwendung sowie die modifizierte stärke | |
| DE19636917A1 (de) | Nucleinsäuremoleküle codierend Enzyme aus Weizen, die an der Stärkesynthese beteiligt sind | |
| DE19621588A1 (de) | Nucleinsäuremoleküle codierend Enzyme aus Weizen, die an der Stärkesynthese beteiligt sind |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| 8327 | Change in the person/name/address of the patent owner |
Owner name: BAYER CROPSCIENCE AG, 40789 MONHEIM, DE |
|
| 8364 | No opposition during term of opposition |