KR20200079492A - 이중특이성 2+1 컨터체 - Google Patents

이중특이성 2+1 컨터체 Download PDF

Info

Publication number
KR20200079492A
KR20200079492A KR1020207011913A KR20207011913A KR20200079492A KR 20200079492 A KR20200079492 A KR 20200079492A KR 1020207011913 A KR1020207011913 A KR 1020207011913A KR 20207011913 A KR20207011913 A KR 20207011913A KR 20200079492 A KR20200079492 A KR 20200079492A
Authority
KR
South Korea
Prior art keywords
amino acid
seq
acid sequence
cdr
chain variable
Prior art date
Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
Ceased
Application number
KR1020207011913A
Other languages
English (en)
Inventor
마리아 아만
콜러 클라우디아 페라라
레토 플루리
구이 게오르게스
잔트라 그라우-리카르츠
알렉산더 하스
프리데리케 헤세
자비네 임호프-융
크리스티안 클라인
Original Assignee
에프. 호프만-라 로슈 아게
Priority date (The priority date is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the date listed.)
Filing date
Publication date
Application filed by 에프. 호프만-라 로슈 아게 filed Critical 에프. 호프만-라 로슈 아게
Publication of KR20200079492A publication Critical patent/KR20200079492A/ko
Ceased legal-status Critical Current

Links

Images

Classifications

    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
    • C07K16/18—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans
    • C07K16/28—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans against receptors, cell surface antigens or cell surface determinants
    • C07K16/2878—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans against receptors, cell surface antigens or cell surface determinants against the NGF-receptor/TNF-receptor superfamily, e.g. CD27, CD30, CD40, CD95
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K39/00—Medicinal preparations containing antigens or antibodies
    • A61K39/395—Antibodies; Immunoglobulins; Immune serum, e.g. antilymphocytic serum
    • A61K39/39533—Antibodies; Immunoglobulins; Immune serum, e.g. antilymphocytic serum against materials from animals
    • A61K39/3955—Antibodies; Immunoglobulins; Immune serum, e.g. antilymphocytic serum against materials from animals against proteinaceous materials, e.g. enzymes, hormones, lymphokines
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K45/00—Medicinal preparations containing active ingredients not provided for in groups A61K31/00 - A61K41/00
    • A61K45/06—Mixtures of active ingredients without chemical characterisation, e.g. antiphlogistics and cardiaca
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
    • A61P35/00—Antineoplastic agents
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
    • C07K16/18—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans
    • C07K16/28—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans against receptors, cell surface antigens or cell surface determinants
    • C07K16/30—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against material from animals or humans against receptors, cell surface antigens or cell surface determinants from tumour cells
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K16/00—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies
    • C07K16/40—Immunoglobulins [IG], e.g. monoclonal or polyclonal antibodies against enzymes
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K39/00—Medicinal preparations containing antigens or antibodies
    • A61K2039/505—Medicinal preparations containing antigens or antibodies comprising antibodies
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/30—Immunoglobulins specific features characterized by aspects of specificity or valency
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/30—Immunoglobulins specific features characterized by aspects of specificity or valency
    • C07K2317/31—Immunoglobulins specific features characterized by aspects of specificity or valency multispecific
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/40—Immunoglobulins specific features characterized by post-translational modification
    • C07K2317/41—Glycosylation, sialylation, or fucosylation
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/50—Immunoglobulins specific features characterized by immunoglobulin fragments
    • C07K2317/52—Constant or Fc region; Isotype
    • C07K2317/524—CH2 domain
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/50—Immunoglobulins specific features characterized by immunoglobulin fragments
    • C07K2317/52—Constant or Fc region; Isotype
    • C07K2317/526—CH3 domain
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/50—Immunoglobulins specific features characterized by immunoglobulin fragments
    • C07K2317/52—Constant or Fc region; Isotype
    • C07K2317/53—Hinge
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/50—Immunoglobulins specific features characterized by immunoglobulin fragments
    • C07K2317/55—Fab or Fab'
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/50—Immunoglobulins specific features characterized by immunoglobulin fragments
    • C07K2317/56—Immunoglobulins specific features characterized by immunoglobulin fragments variable (Fv) region, i.e. VH and/or VL
    • C07K2317/565—Complementarity determining region [CDR]
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/60—Immunoglobulins specific features characterized by non-natural combinations of immunoglobulin fragments
    • C07K2317/62—Immunoglobulins specific features characterized by non-natural combinations of immunoglobulin fragments comprising only variable region components
    • C07K2317/622—Single chain antibody (scFv)
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/60—Immunoglobulins specific features characterized by non-natural combinations of immunoglobulin fragments
    • C07K2317/64—Immunoglobulins specific features characterized by non-natural combinations of immunoglobulin fragments comprising a combination of variable region and constant region components
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/70—Immunoglobulins specific features characterized by effect upon binding to a cell or to an antigen
    • C07K2317/71—Decreased effector function due to an Fc-modification
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/70—Immunoglobulins specific features characterized by effect upon binding to a cell or to an antigen
    • C07K2317/75—Agonist effect on antigen
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2317/00—Immunoglobulins specific features
    • C07K2317/90—Immunoglobulins specific features characterized by (pharmaco)kinetic aspects or by stability of the immunoglobulin
    • C07K2317/92—Affinity (KD), association rate (Ka), dissociation rate (Kd) or EC50 value
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2319/00—Fusion polypeptide
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K2319/00—Fusion polypeptide
    • C07K2319/30—Non-immunoglobulin-derived peptide or protein having an immunoglobulin constant or Fc region, or a fragment thereof, attached thereto

Landscapes

  • Health & Medical Sciences (AREA)
  • Chemical & Material Sciences (AREA)
  • Organic Chemistry (AREA)
  • Life Sciences & Earth Sciences (AREA)
  • Immunology (AREA)
  • Medicinal Chemistry (AREA)
  • General Health & Medical Sciences (AREA)
  • Proteomics, Peptides & Aminoacids (AREA)
  • Molecular Biology (AREA)
  • Genetics & Genomics (AREA)
  • Biophysics (AREA)
  • Biochemistry (AREA)
  • Pharmacology & Pharmacy (AREA)
  • Veterinary Medicine (AREA)
  • Public Health (AREA)
  • Animal Behavior & Ethology (AREA)
  • Cell Biology (AREA)
  • Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
  • General Chemical & Material Sciences (AREA)
  • Chemical Kinetics & Catalysis (AREA)
  • Epidemiology (AREA)
  • Endocrinology (AREA)
  • Engineering & Computer Science (AREA)
  • Bioinformatics & Cheminformatics (AREA)
  • Microbiology (AREA)
  • Mycology (AREA)
  • Peptides Or Proteins (AREA)
  • Preparation Of Compounds By Using Micro-Organisms (AREA)
  • Micro-Organisms Or Cultivation Processes Thereof (AREA)
  • Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
  • Medicines Containing Antibodies Or Antigens For Use As Internal Diagnostic Agents (AREA)

Abstract

본 발명은 제1 표적에 특이적으로 결합가능한 2개의 항원 결합 도메인 및 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인을 포함하는 2개의 융합 폴리펩티드로 이루어진 신규한 이중특이성 항체, 상기 분자의 제조 방법 및 이의 사용 방법에 관한 것이다.

Description

이중특이성 2+1 컨터체
본 발명은 제1 표적에 특이적으로 결합가능한 2개의 항원 결합 도메인 및 제2 표적에 결합가능한 하나의 항원 결합 도메인을 포함하는 2개의 융합 폴리펩티드로 이루어진 신규한 이중특이성 항체(컨터체(contorsbody)), 상기 분자의 제조 방법 및 상기 분자의 사용 방법에 관한 것이다.
1974년에 쾰러(Koehler)에 의해 최초의 단클론 항체가 개발된 이래로, 인간 치료에 적절한 항체의 개발에 대한 수많은 노력들이 이뤄져 왔다. 이용가능하게 된 최초의 단클론 항체는 마우스 및 래트에서 개발되었다. 이러한 항체가 인간 치료에 사용될 때, 항-설치류 항체에 기인하여 원치않는 부작용들이 야기되었다. 이러한 원치않는 부작용들을 감소시키거나 심지어 제거하기 위한 수많은 노력들이 이뤄져 왔다. 지난 수년간, 지속 증가세의 인간 단클론 항체 또는 인간화된 단클론 항체가 시장에 출시되어 왔다.
진단 및 치료 적용례에 있어서 이중특이성 항체에 대한 관심이 증가해 왔다. 자연 항체가 단일특이성인 반면, 이중특이성 항체는 동일하거나 상이한 항원에 대해 2개의 상이한 에피토프를 인식한다. 지난 수년에 걸쳐, 수많은 신규한 형식의 항체들이 개발되어 왔다. 정교한 분자 디자인 및 유전 공학의 적용은 이중특이성 항체의 형성과 관련된 다수의 기술적 문제, 예컨대 안정성, 용해성, 및 약물 특성을 부여하는 기타 매개변수들을 해결해 왔고, 이는 용어 "개발가능성"으로 요약될 수 있다. 또한, 생성되는 이중특이성 항체의 상이한 목적 특징(즉 표적 생성 프로파일)은 다양한 틀의 항체 형식에 접근함을 필요로 하게 하였다. 이러한 형식은 크기, 이의 결합 모듈의 기하구조, 가수, 융통성 및 이의 약동학적 특성에 있어 다양할 수 있다(문헌[Brinkmann U. and Kontermann R.E., MABS 2017, 9(2), 182-212]).
그러나, 모든 요건에 최선인 형태가 없고, 야생형 4개 쇄 Y-형태 항체 형식로부터 유도되는 항체 형식을 최적화할 잠재성이 여전히 존재하는 것으로 보인다. 약학 제품으로서 사용하기 위해, 이중특이성 항체는 대량으로 재생산가능한 방식으로, 바람직하게는 고수율로 제조되어야 할 필요가 있다. 보다 복합적인 조성(예컨대 2개 쇄 IgG와 비교하여 3 또는 4개 쇄 IgG)은 종종 발현 시스템의 보다 광대한 최적화를 요한다. 또한, 목적하지 않는 부생성물의 존재 또는 부재가 매우 중요할 수 있다.
본 발명은 특히 2개의 쇄로 이루어지지만 3개의 항원 결합 도메인을 포함하는 이중특이성 항체에 관한 것이다. 본 발명의 항체는 항원 결합 도메인의 공간적 배향에 있어서 IgG 형식의 종래의 항체와는 상이하다.
본 발명은 2개의 융합 폴리펩티드로 이루어지고 제1 표적에 특이적으로 결합가능한 2개의 항원 결합 도메인 및 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인을 포함하는 이중특이성 항체로서,
(a) 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분, 스페이서(spacer) 도메인, 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분을 포함하는 제1 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제1 융합 폴리펩티드; 및
(b) 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분, 스페이서 도메인, 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분을 포함하는 제2 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제2 융합 폴리펩티드
를 포함하고,
상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 제2 표적에 특이적으로 결합가능한 항원 결합 도메인을 형성하고, 상기 제1 표적에 특이적으로 결합할 수 잇는 제1 항원 및 제2 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 고리형 융합 폴리펩티드를 형성하고,
상기 제1 융합 폴리펩티드의 스페이서 도메인 및 상기 제2 융합 폴리펩티드의 스페이서 도메인이 다이설파이드 결합에 의해 서로 공유결합으로 회합되고 상기 제1 융합 폴리펩티드와 상기 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함하는,
이중특이성 항체를 제시한다.
하나의 양상에서, 제1 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되고; 제2 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 본원에서 상기 정의된 이중특이성 항체가 제시된다.
또 다른 양상에서, 제1 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되고; 제2 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 본원에서 상기 정의된 이중특이성 항체가 제시된다.
하나의 양상에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분 또는 제2 부분을 연결하는 제3 펩티드 연결자가 15개 이상의 아미노산을 포함하는, 본원에서 상기 정의된 항체가 제시된다. 하나의 양상에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분을 연결하는 제3 펩티드 연결자와 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분을 연결하는 제3 펩티드 연결자는 동일하다. 하나의 양상에서, 제3 펩티드 연결자는 15 내지 25개의 아미노산을 포함한다. 하나의 특정 양상에서, 제3 펩티드 연결자는 서열번호 84의 아미노산 서열을 포함한다.
하나의 양상에서, 제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하고; 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하거나, 제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하고; 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하는, 본원에서 상기 정의된 이중특이성 항체가 제시된다. 하나의 특정 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 중쇄 Fab 단편이고; 제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 경쇄 Fab 단편이거나, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 중쇄 Fab 단편이고; 제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 경쇄 Fab 단편이다. 하나의 양상에서, 항원 결합 도메인의 제1 부분 및 항원 결합 도메인의 제2 부분은 다이설파이드 결합에 의해 서로 공유결합으로 회합된다.
따라서, 하나의 양상에서, 항원 결합 도메인의 제1 부분은 항체 중쇄 Fab 단편(VH-CH1)이고 항원 결합 도메인의 제2 부분은 항원 경쇄 Fab 단편(VL-C카파(VL-Ckappa))이다. 또 다른 양상에서, 항원 결합 도메인의 제1 부분은 항원 경쇄 Fab 단편이고 항원 결합 도메인의 제2 부분은 중쇄 Fab 도메인이다. 또 다른 양상에서, 항원 결합 도메인의 제1 부분은 VH-C카파를 포함하는 항체 가교(cross) Fab 단편이고 항원 결합 도메인의 제2 부분은 VL-CH1을 포함하는 항체 교차 Fab 단편이다. 추가의 양상에서, 항원 결합 도메인의 제1 부분은 VL-CH1을 포함하는 항체 교차 Fab 단편이고 항원 결합 도메인의 제2 부분은 VH-C카파를 포함하는 항체 교차 Fab 단편이다.
전술한 바와 같이, 이중특이성 항체는 제1 융합 폴리펩티드 및 제2 융합 폴리펩티드(둘다 스페이서 도메인을 포함함)로 이루어지고, 제1 융합 폴리펩티드의 스페이서 도메인과 제2 융합 폴리펩티드의 스페이서 도메인은 다이설파이드 결합에 의해 서로 공유결합으로 회합되고, 제1 융합 폴리펩티드와 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 스페이서 도메인은 25개 이상의 아미노산을 포함한다.
본 발명의 하나의 양상에서, 스페이서 도메인은 항체 경첩부(hinge region) 또는 이의 (C-말단) 단편 및 항체 CH2 도메인 또는 이의 (N-말단) 단편을 포함한다. 또 다른 양상에서, 스페이서 도메인은 항체 경첩부 또는 이의 단편, 항체 CH2 도메인, 및 항체 CH3 도메인 또는 이의 단편을 포함한다. 또한, 제1 융합 폴리펩티드의 스페이서 도메인 및 제2 융합 폴리펩티드의 스페이서 도메인은 제1 융합 폴리펩티드와 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 특정 양상에서, 놉 인투 홀 방법(knobs into hole method)에 따라, 제1 융합 폴리펩티드의 스페이서 도메인은 홀을 포함하고, 제2 융합 폴리펩티드는 놉을 포함한다. 추가의 양상에서, 본 발명은 스페이서 도메인이 항체 경첩부 또는 이의 단편 및 IgG1 Fc 도메인을 포함하는, 이중특이성 항체를 포함한다. 특히, IgG1 Fc 도메인은 Fc 수용체, 특히 Fcγ 수용체에 대한 결합을 감소시키는 하나 이상의 아미노산 치환을 포함한다. 보다 특히, IgG1 Fc 도메인은 (카밧 EU 색인(Kabat EU index)에 따른 번호부여로) L234A, L235A 및 P329G의 아미노산 치환을 포함한다.
일부 양상에서, 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인이 종양 관련 항원(TAA)에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 종양 관련 항원은 섬유아세포 활성화 단백질(FAP)이다. 하나의 양상에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인이 FAP에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다.
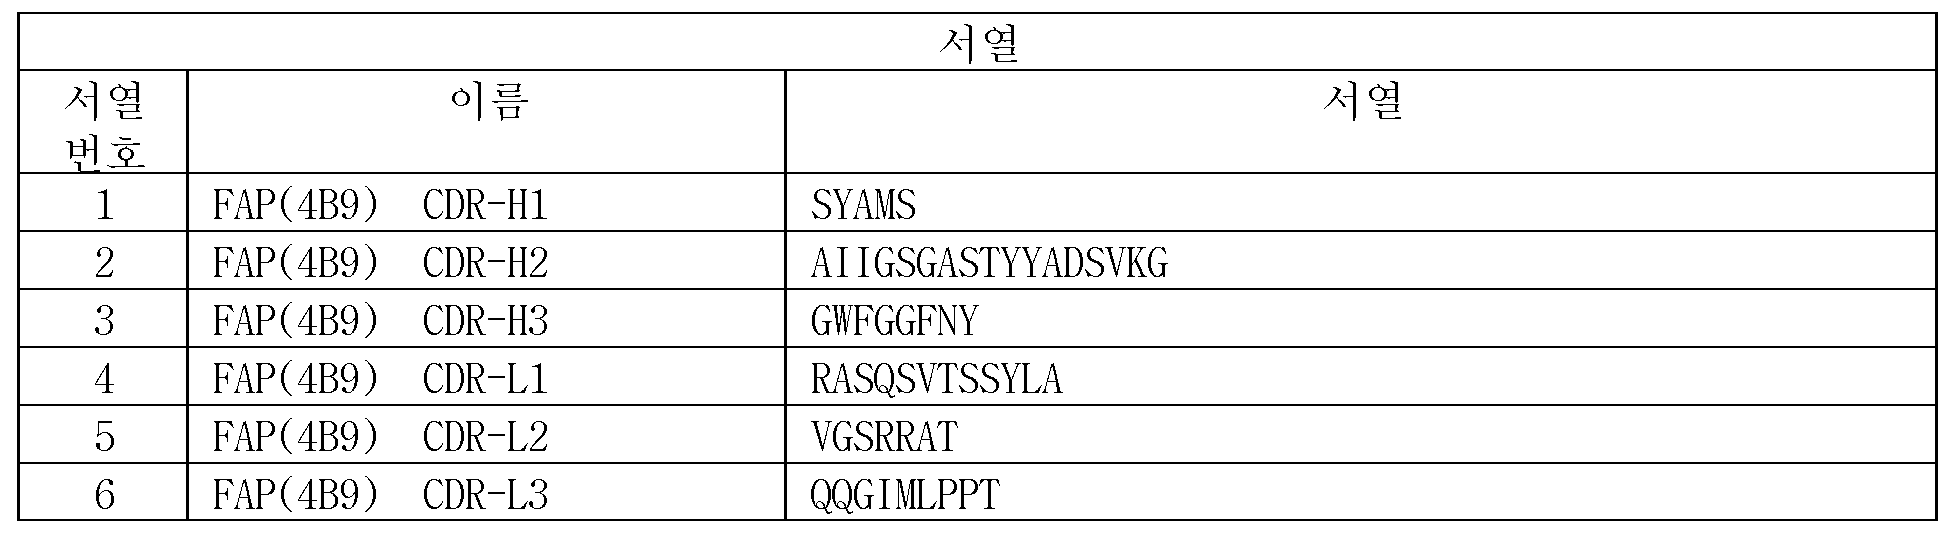
일부 양상에서, FAP에 특이적으로 결합가능한 항원 결합 도메인은
(a) (i) 서열번호 1의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 2의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 3의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHFAP), 및 (iv) 서열번호 4의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 5의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 6의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLFAP); 또는
(b) (i) 서열번호 9의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 10의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 11의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHFAP), 및 (iv) 서열번호 12의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 13의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 14의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLFAP)를 포함한다.
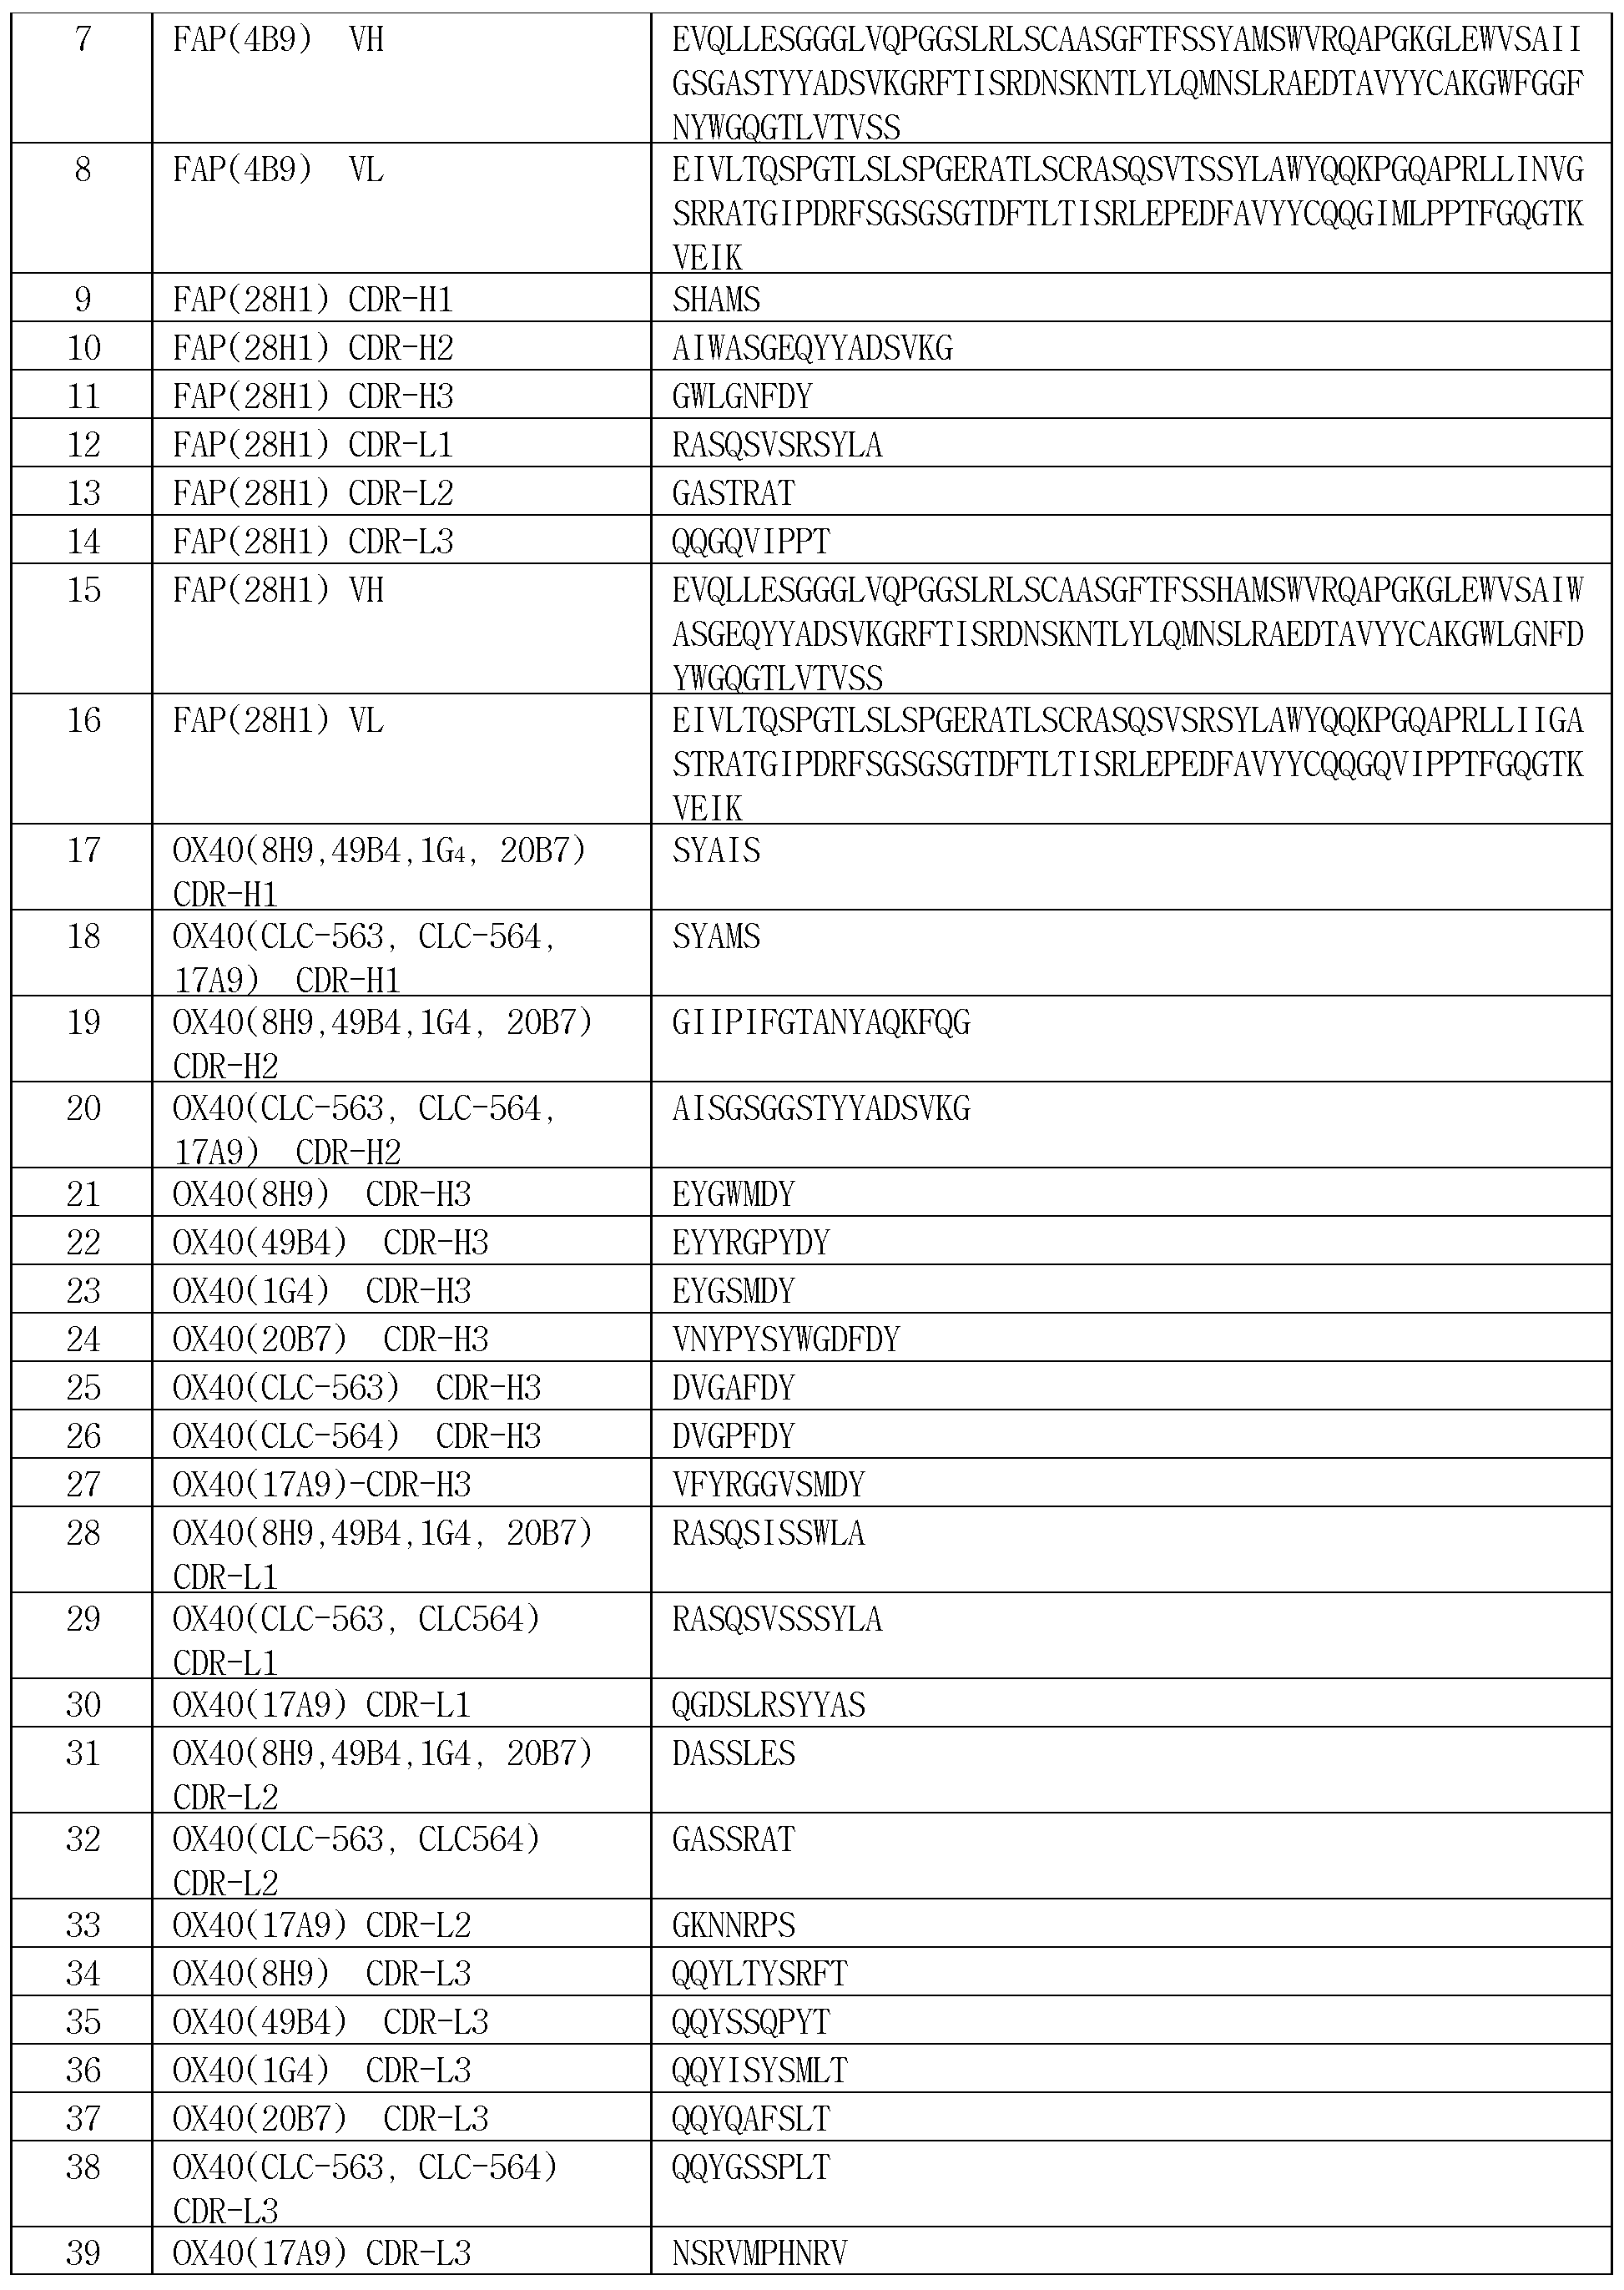
보다 특히, FAP에 특이적으로 결합가능한 항원 결합 도메인은
(a) 서열번호 7의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHFAP), 및 서열번호 8의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 경쇄 가변부(VLFAP); 또는
(b) 서열번호 15의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHFAP), 및 서열번호 16의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 경쇄 가변부(VLFAP)를 포함한다.
일부 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인은 TNF 수용체, 특히 공동자극(costimulatory) TNF 수용체에 특이적으로 결합가능한 항원 결합 도메인이다. 특히, 상기 공동자극 TNF 수용체는 OX40이다. 하나의 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 OX40에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 본 발명의 이중특이성 항체는 OX40에 특이적으로 결합가능한 2개의 항원 결합 도메인을 포함한다.
일부 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은
(a) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 22의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 35의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
(b) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 21의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 34의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
(c) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 23의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 36의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
(d) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 24의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 37의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
(e) (i) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 25의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 29의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 32의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 38의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
(f) (i) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 26의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 29의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 32의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 38의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40); 또는
(f) (i) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 27의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 30의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 33의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 39의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40)를 포함한다.
특히, OX40에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 22의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 35의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40)를 포함한다.
일부 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은
(a) 서열번호 40의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 41의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(b) 서열번호 42의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 43의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(c) 서열번호 44의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 45의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(d) 서열번호 46의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 47의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(e) 서열번호 48의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 49의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(f) 서열번호 50의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 51의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40); 또는
(g) 서열번호 52의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 53의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40)를 포함한다.
하나의 특정 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은 (a) 서열번호 40의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHOX40), 및 서열번호 41의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VLOX40)를 포함한다.
특히, 본 발명은
(a) 서열번호 54의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 55의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
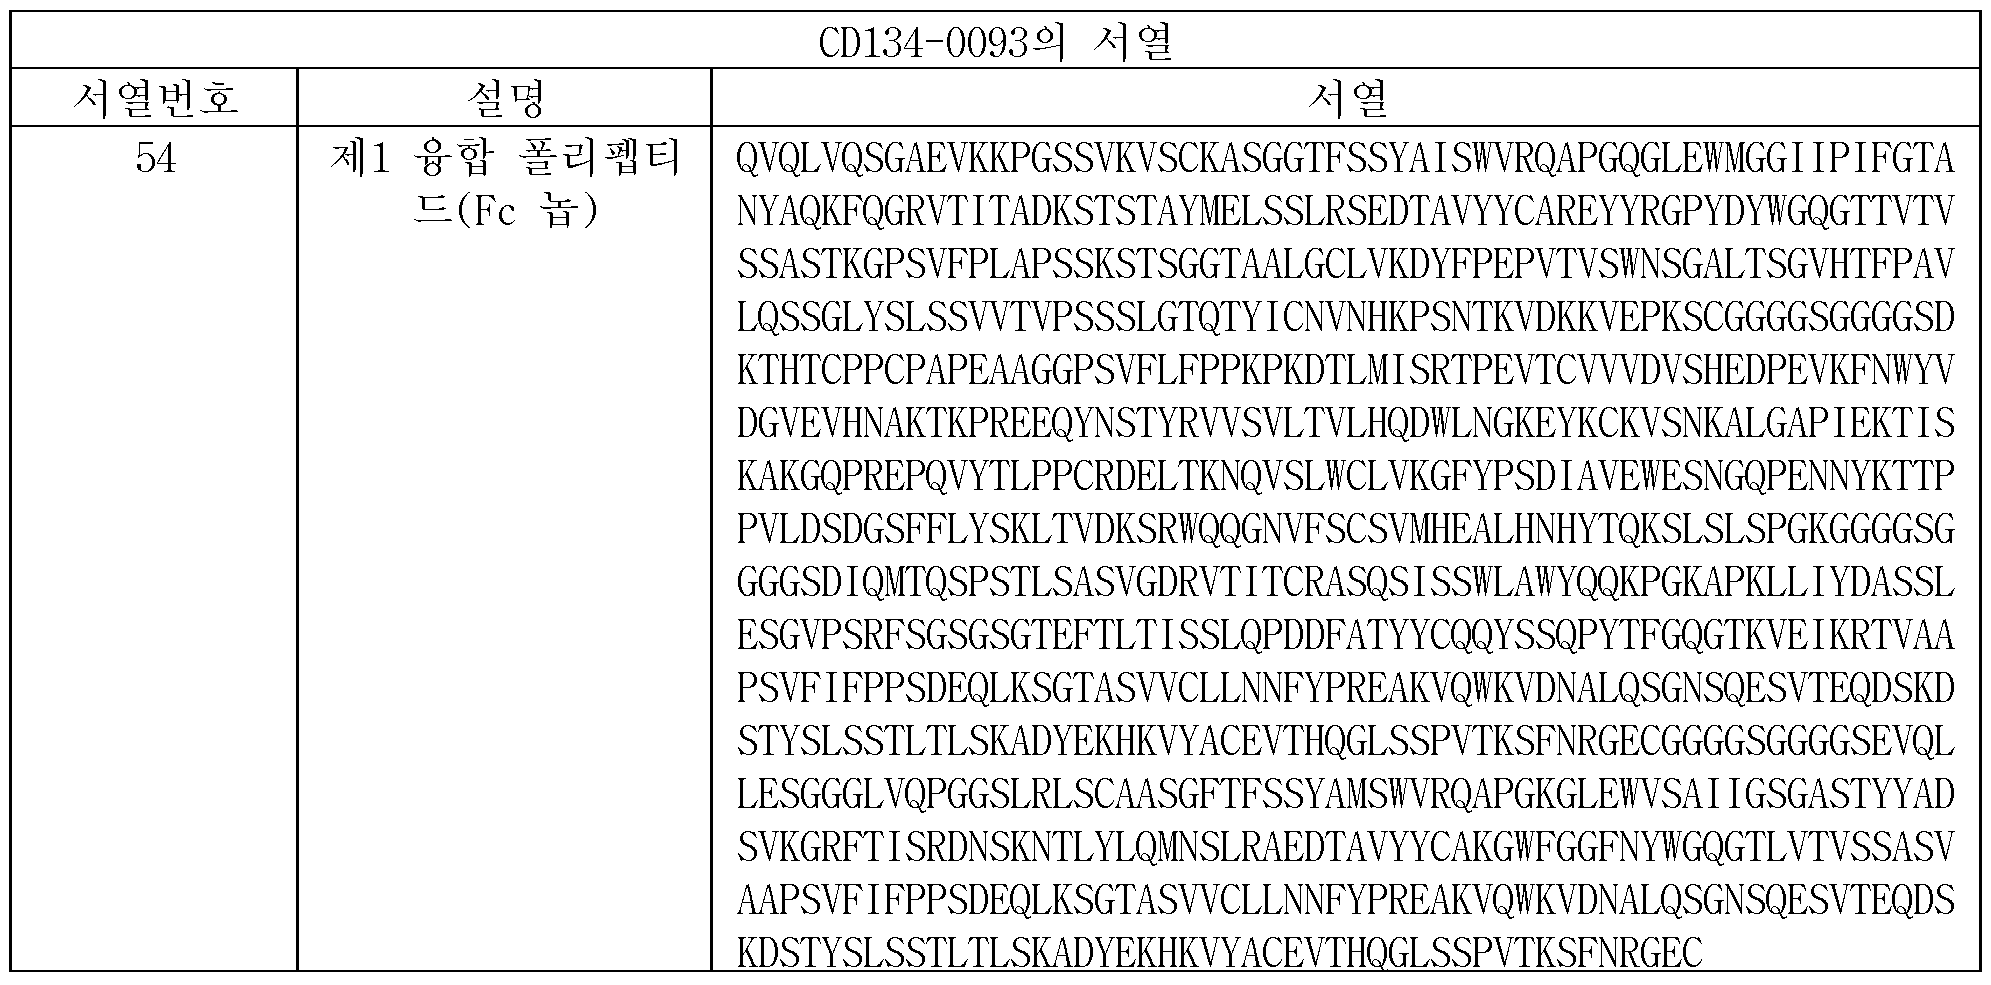
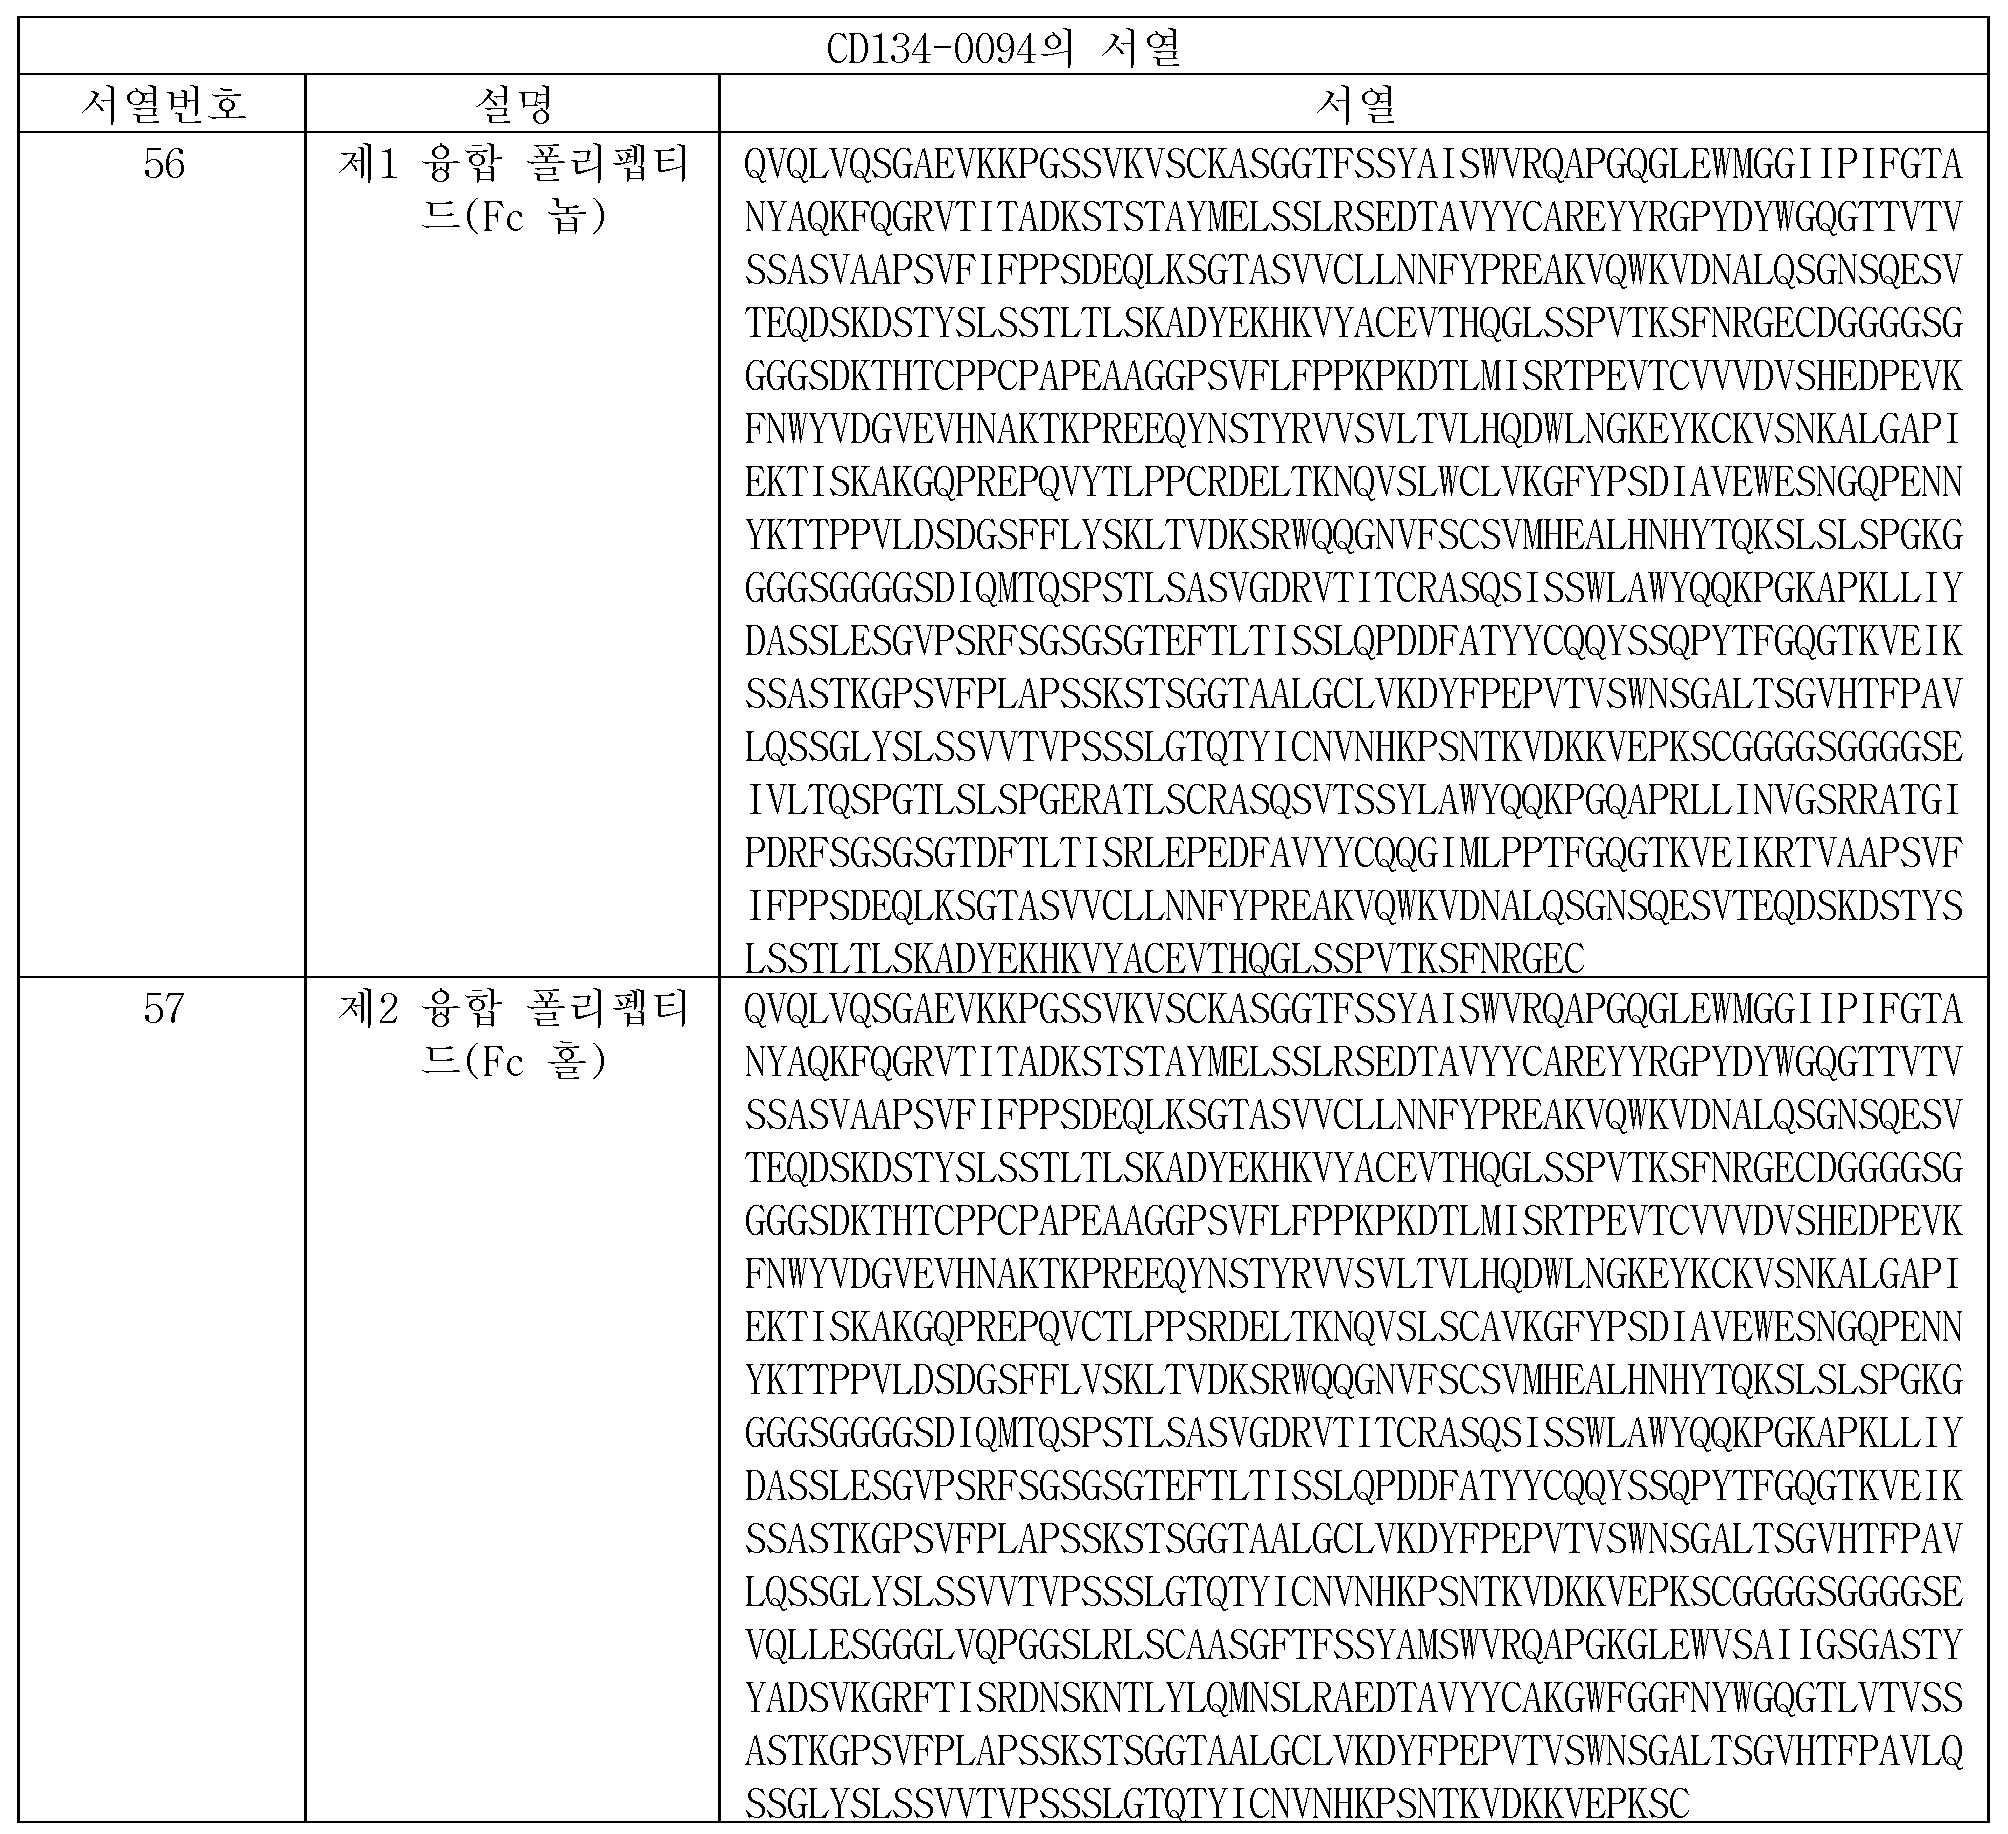
(b) 서열번호 56의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 57의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(c) 서열번호 58의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 59의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(d) 서열번호 60의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 61의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
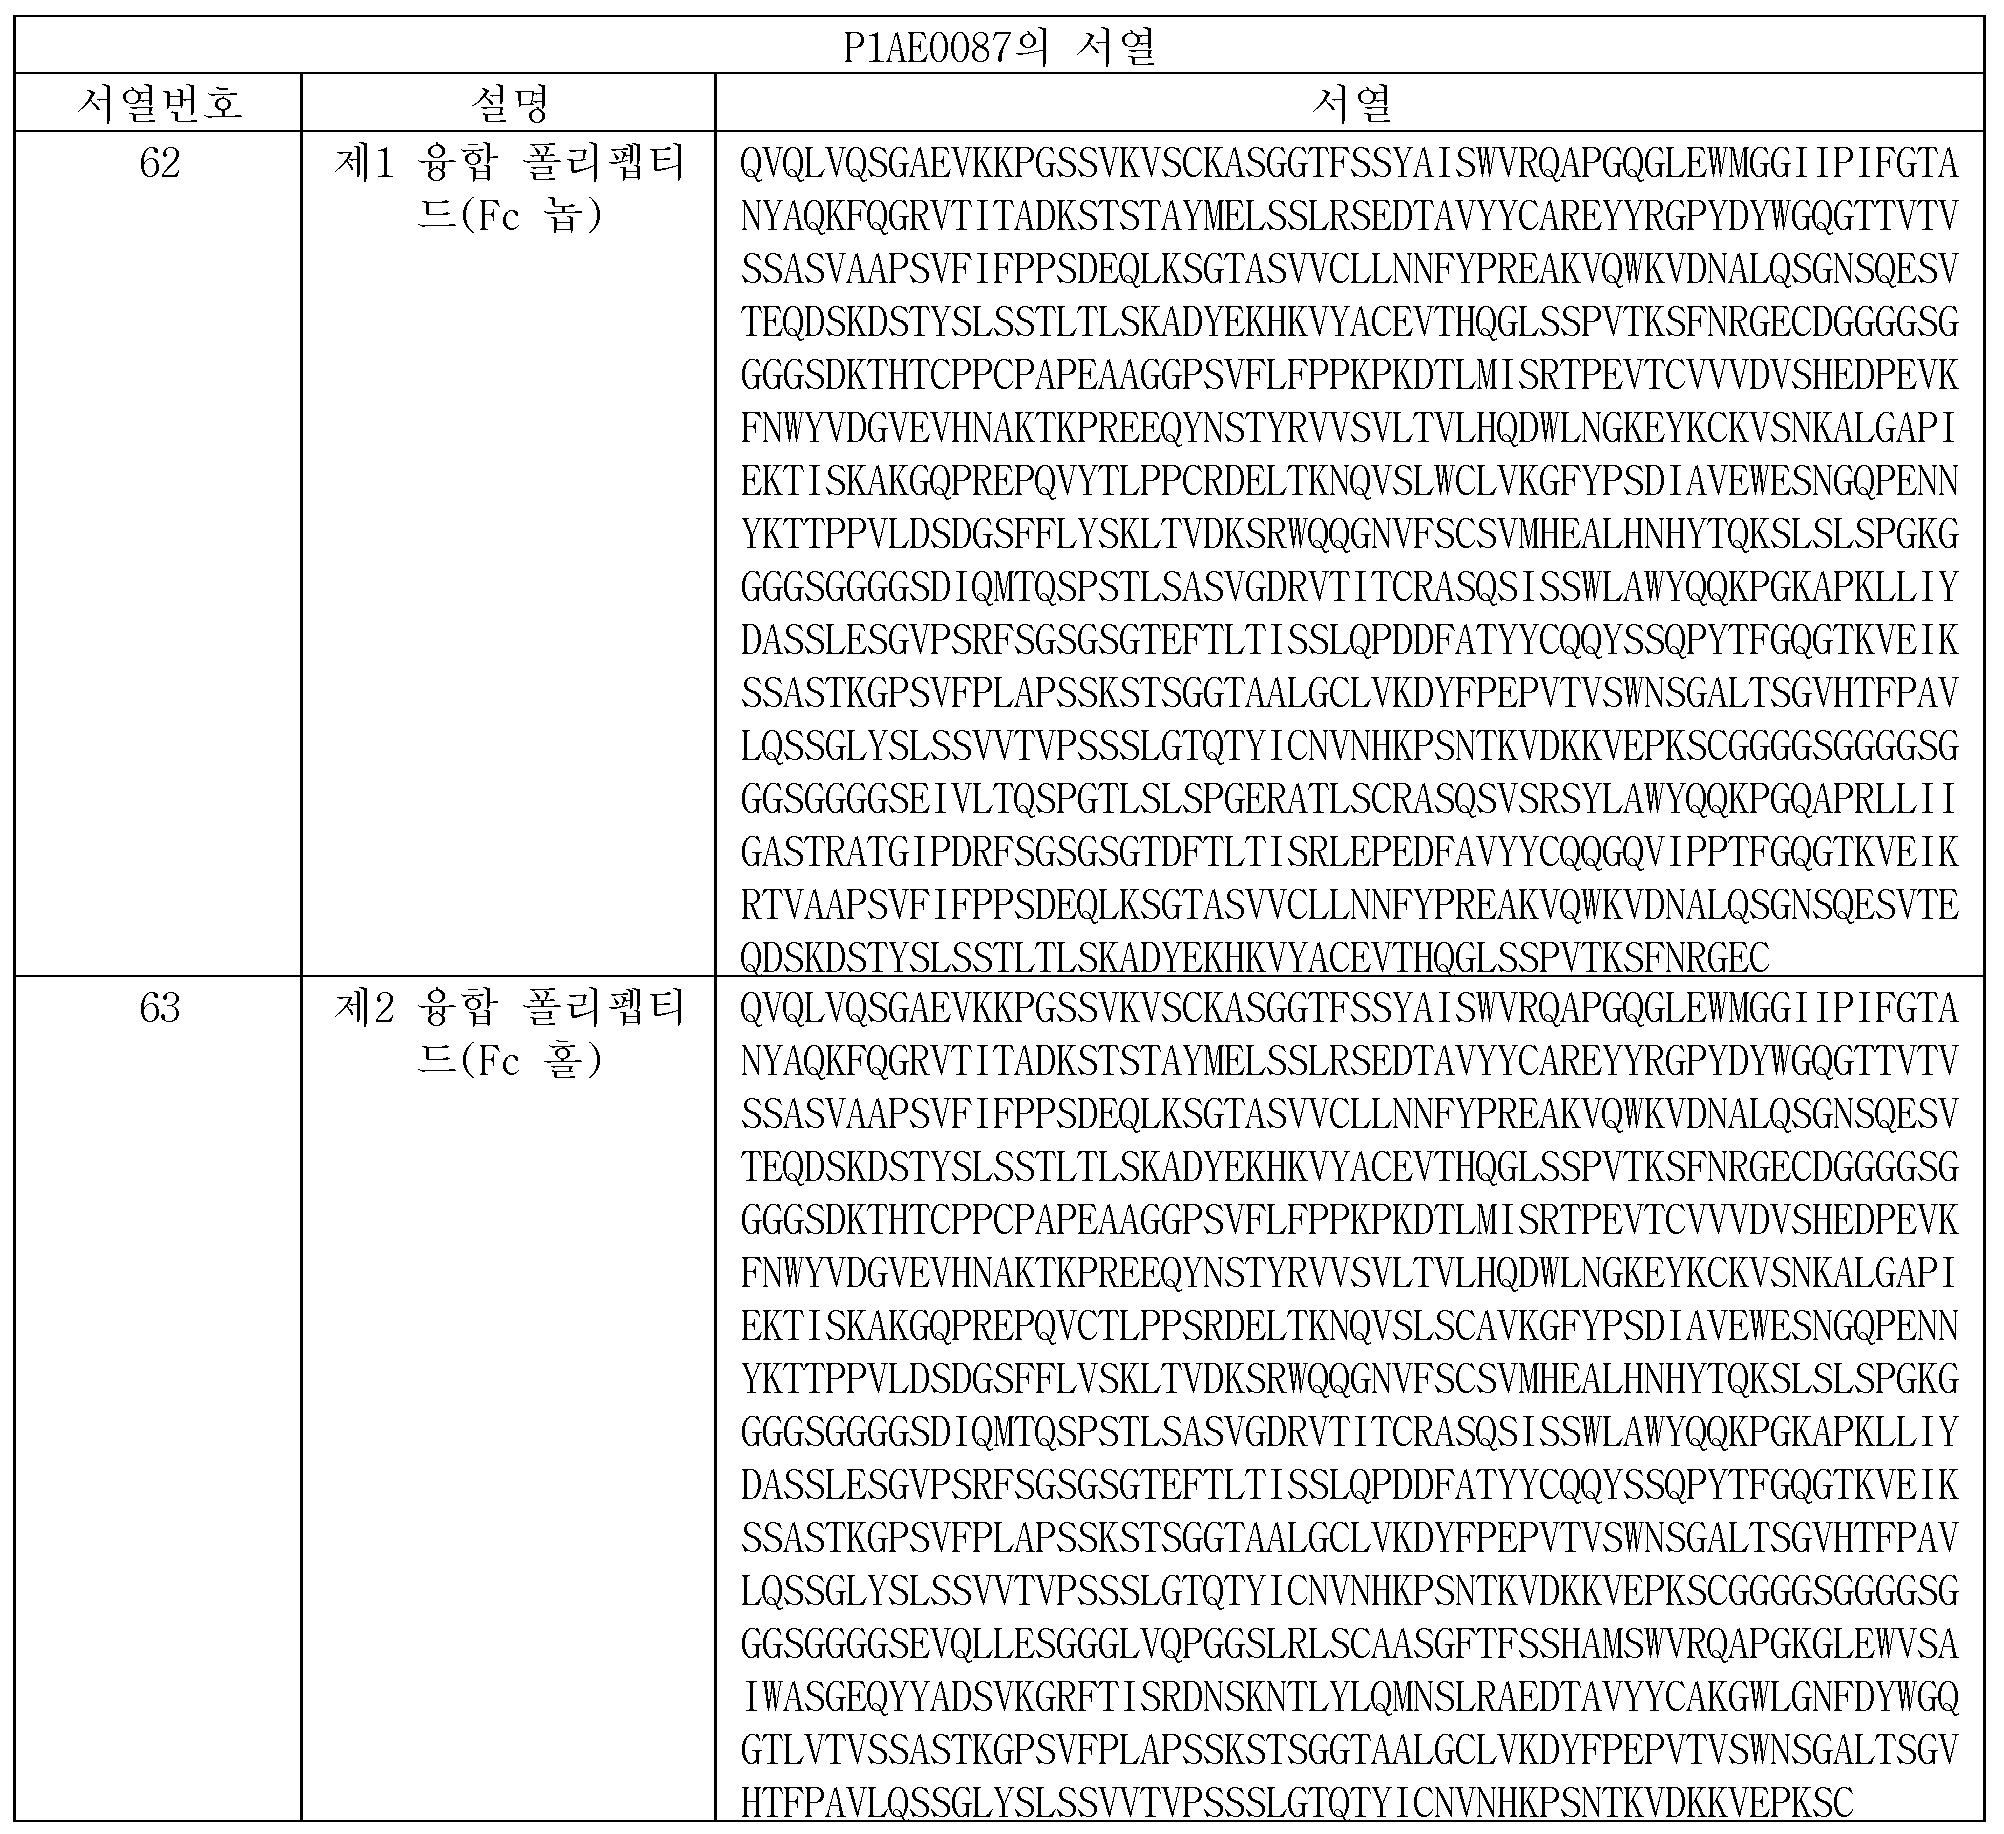
(e) 서열번호 62의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 63의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
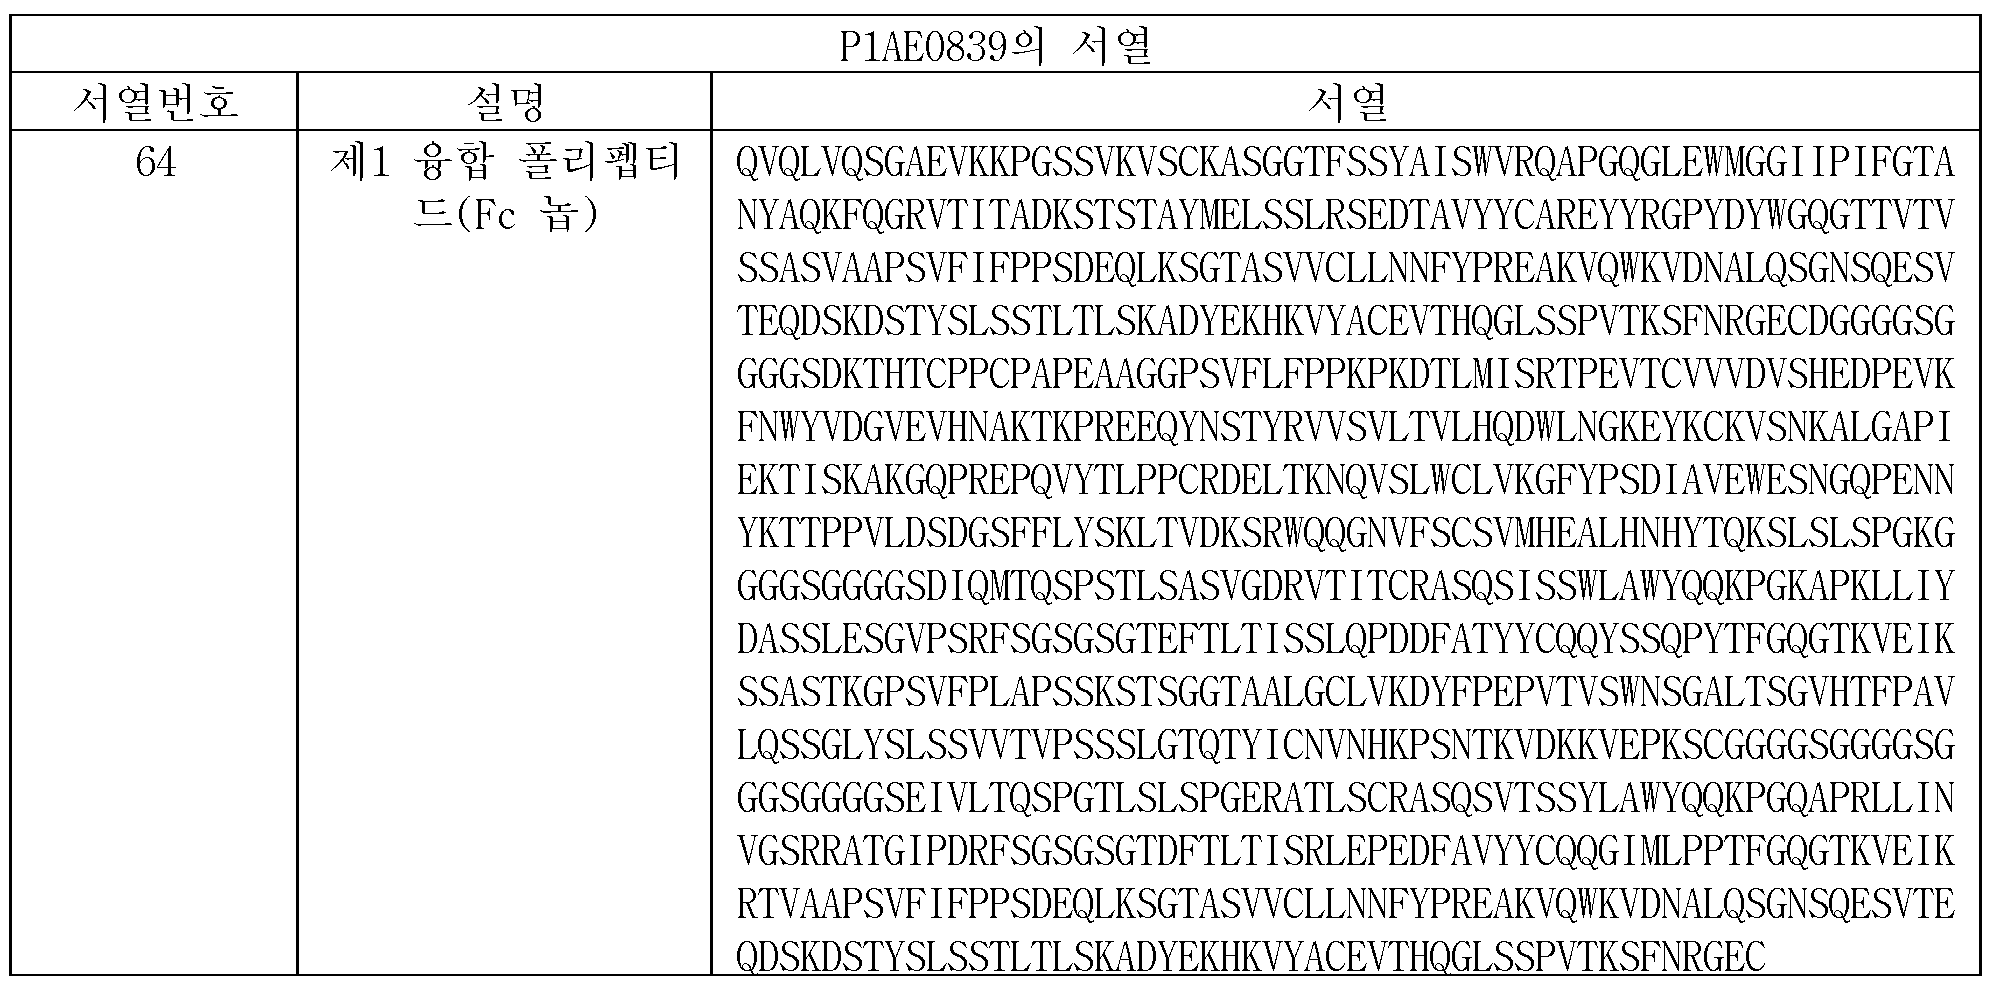
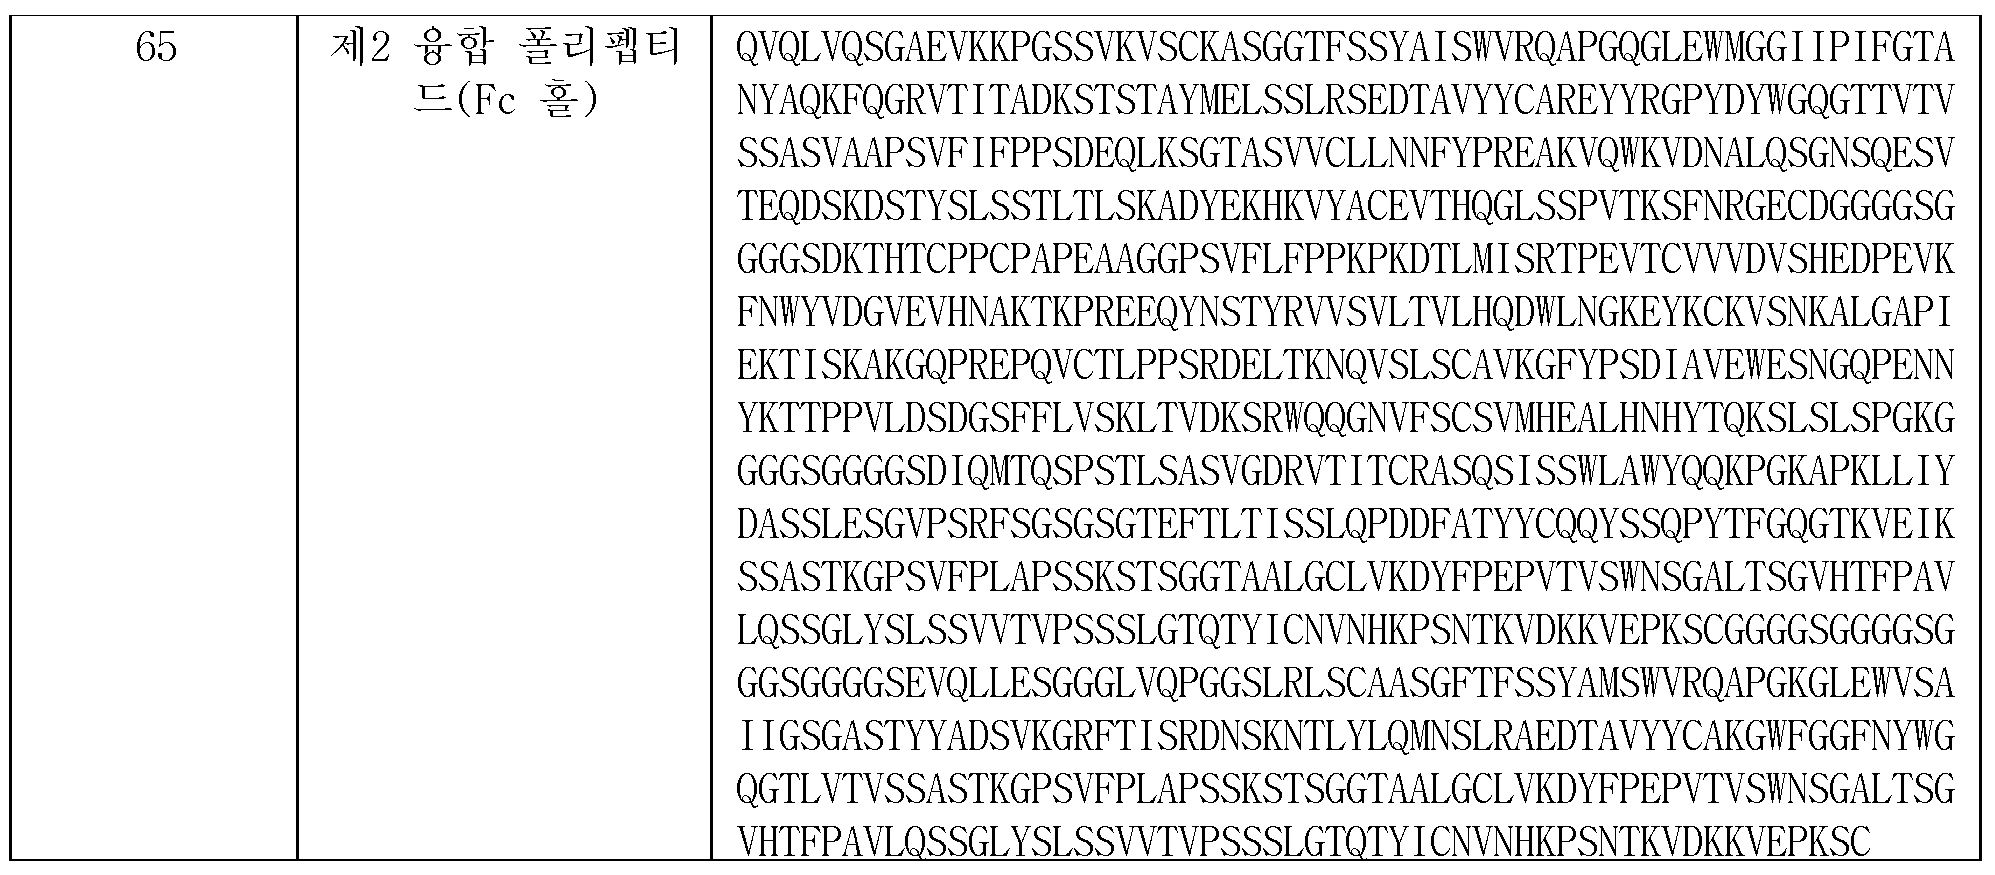
(f) 서열번호 64의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 65의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드; 또는
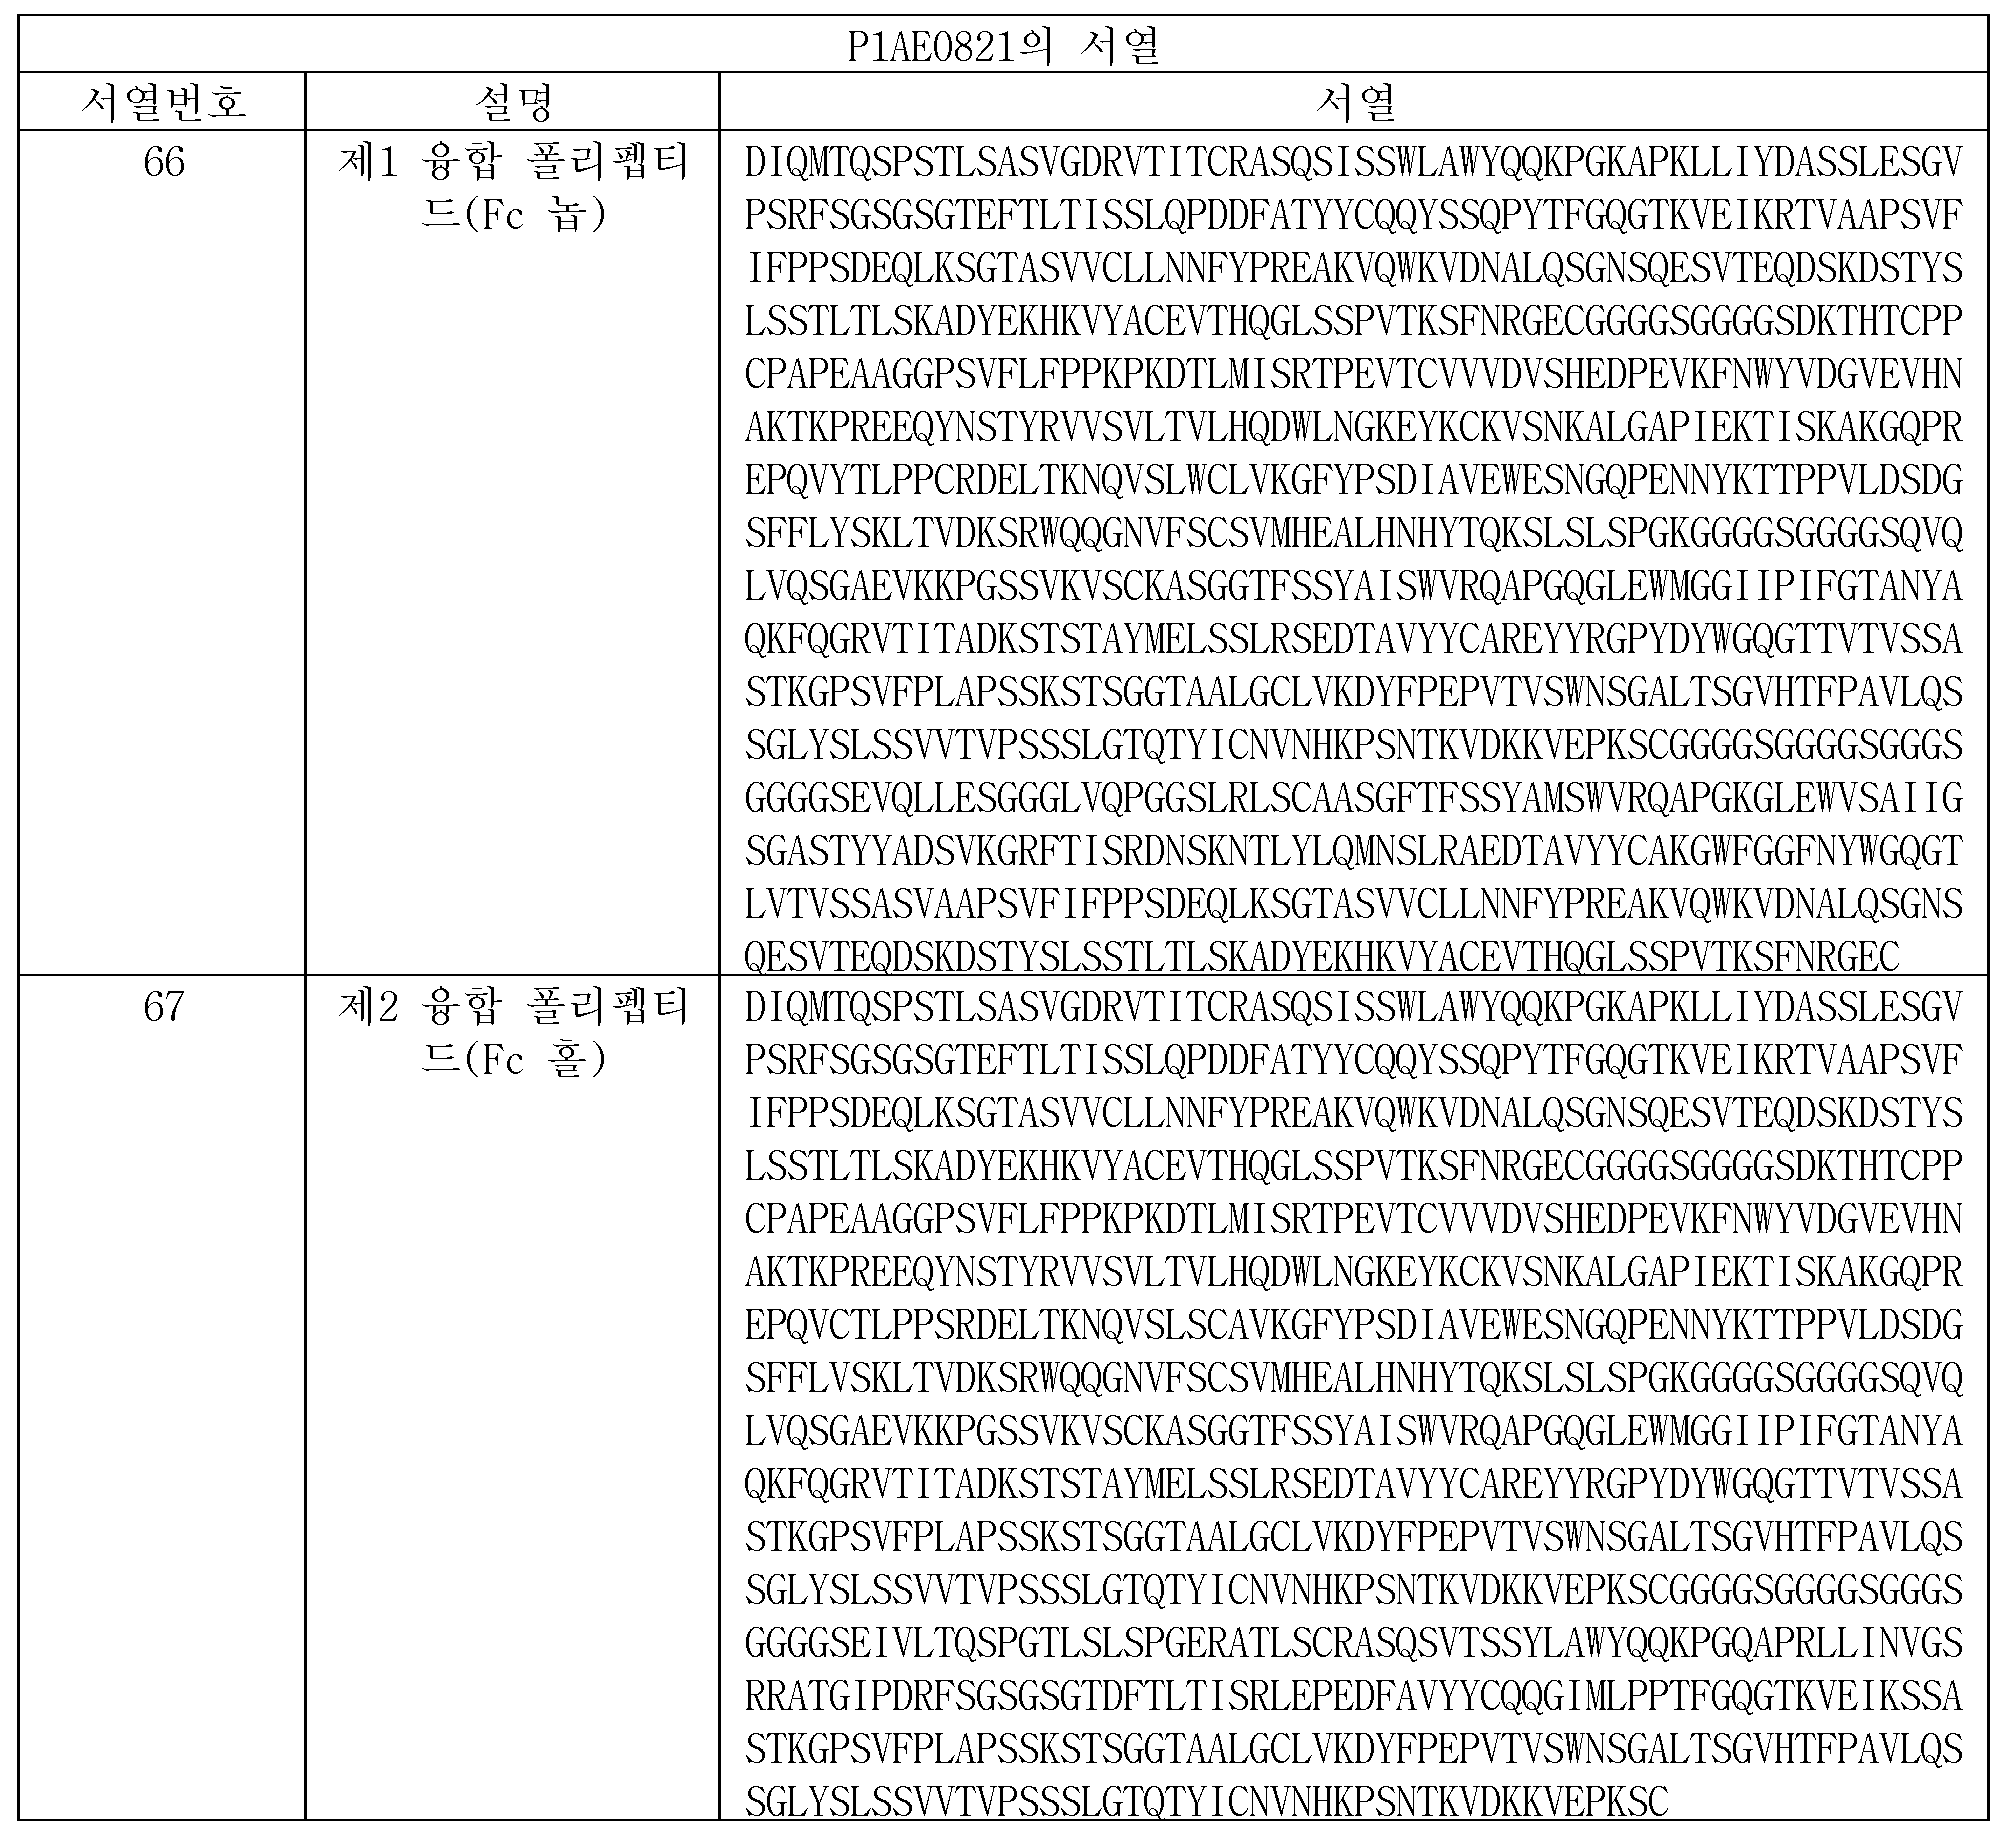
(g) 서열번호 66의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 67의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드를 포함하는 이중특이성 항체를 제시한다.
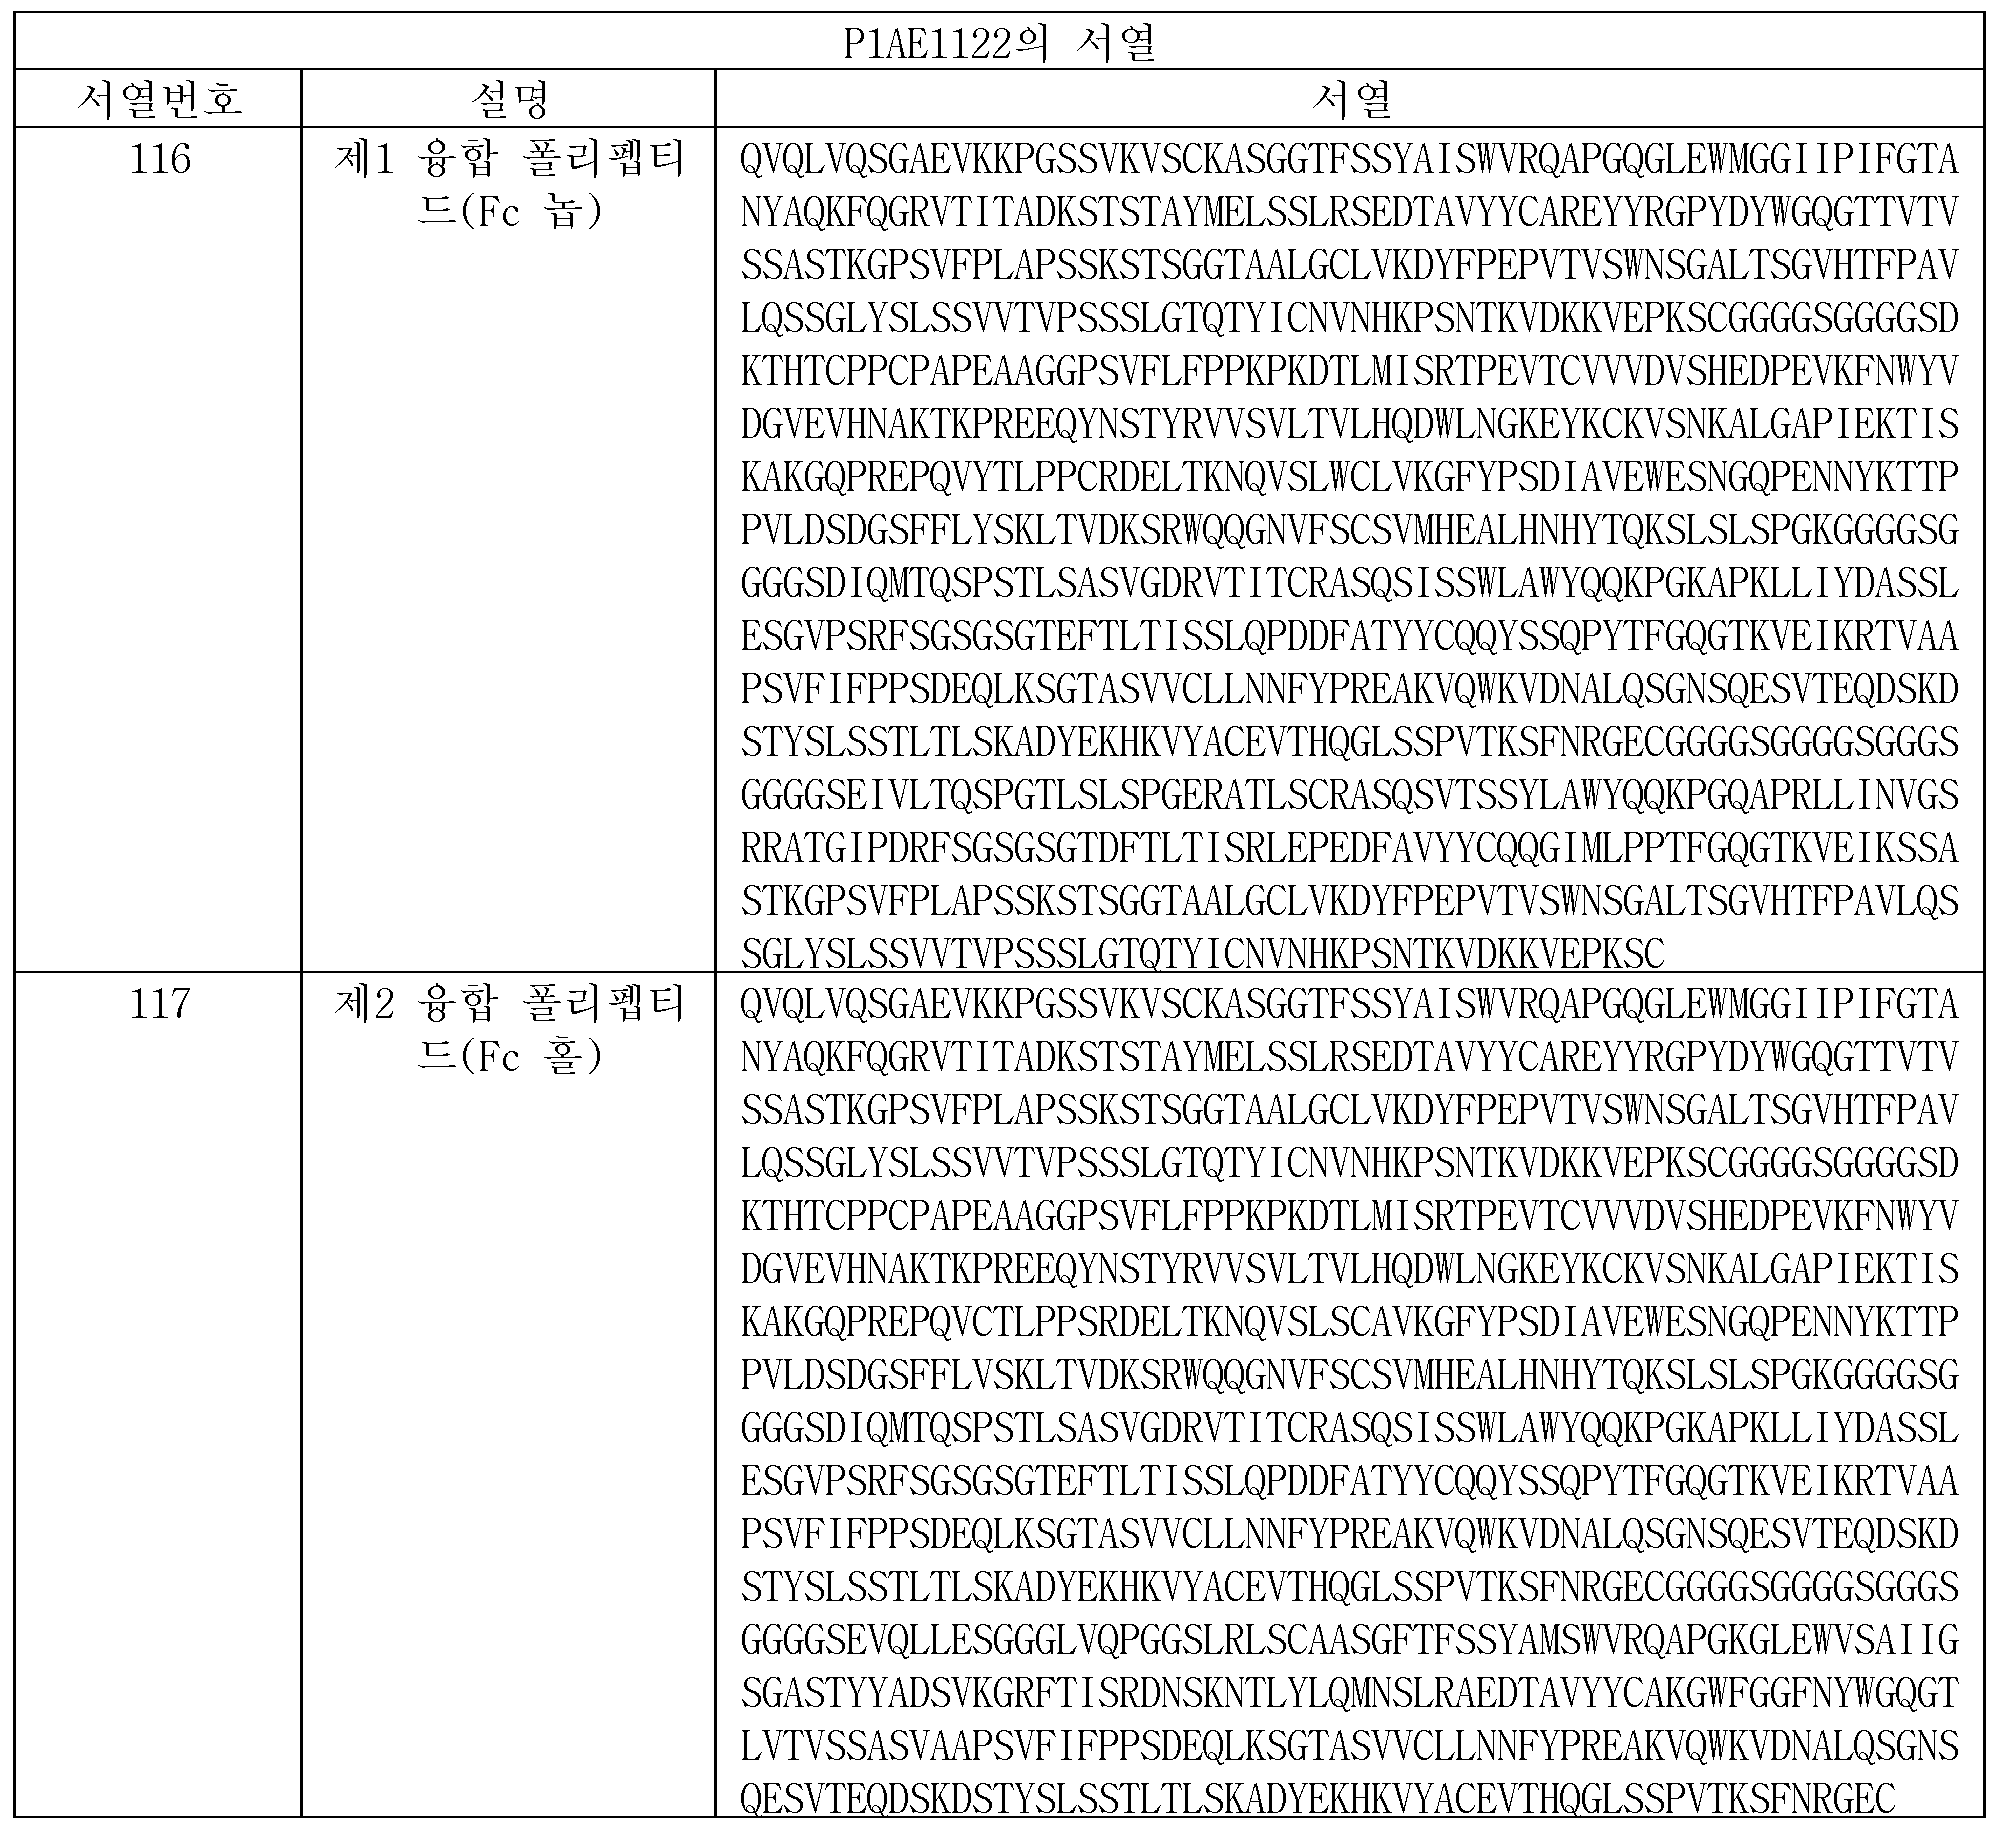
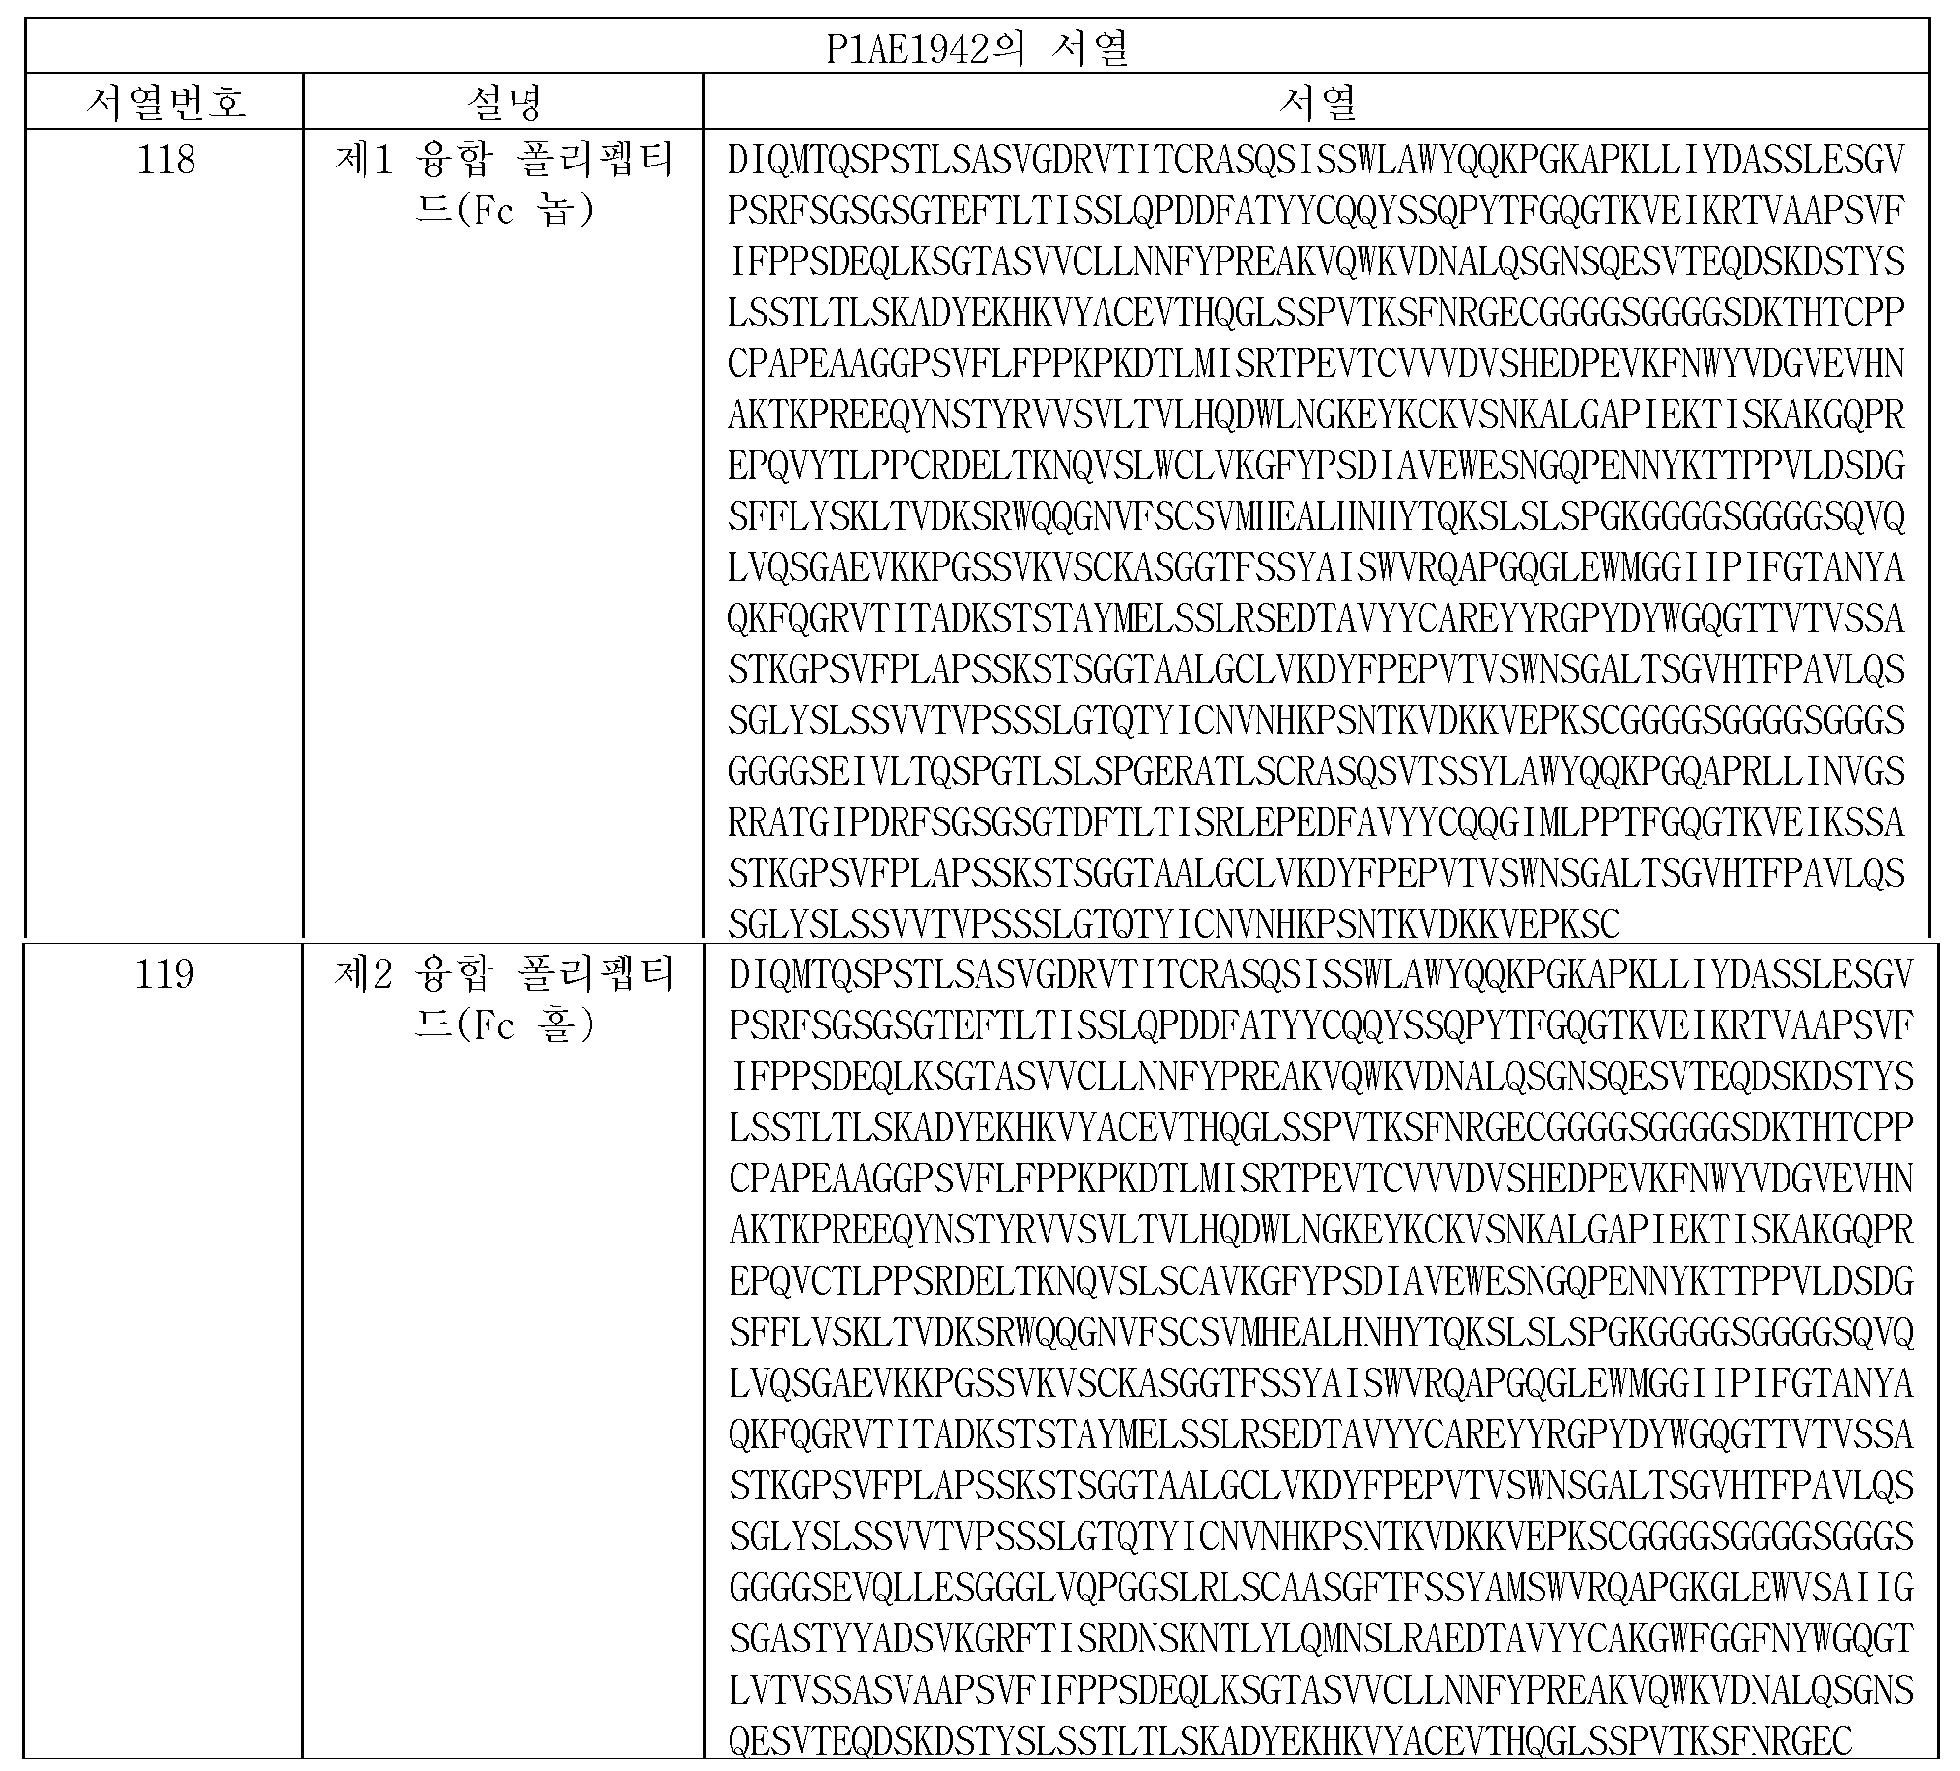
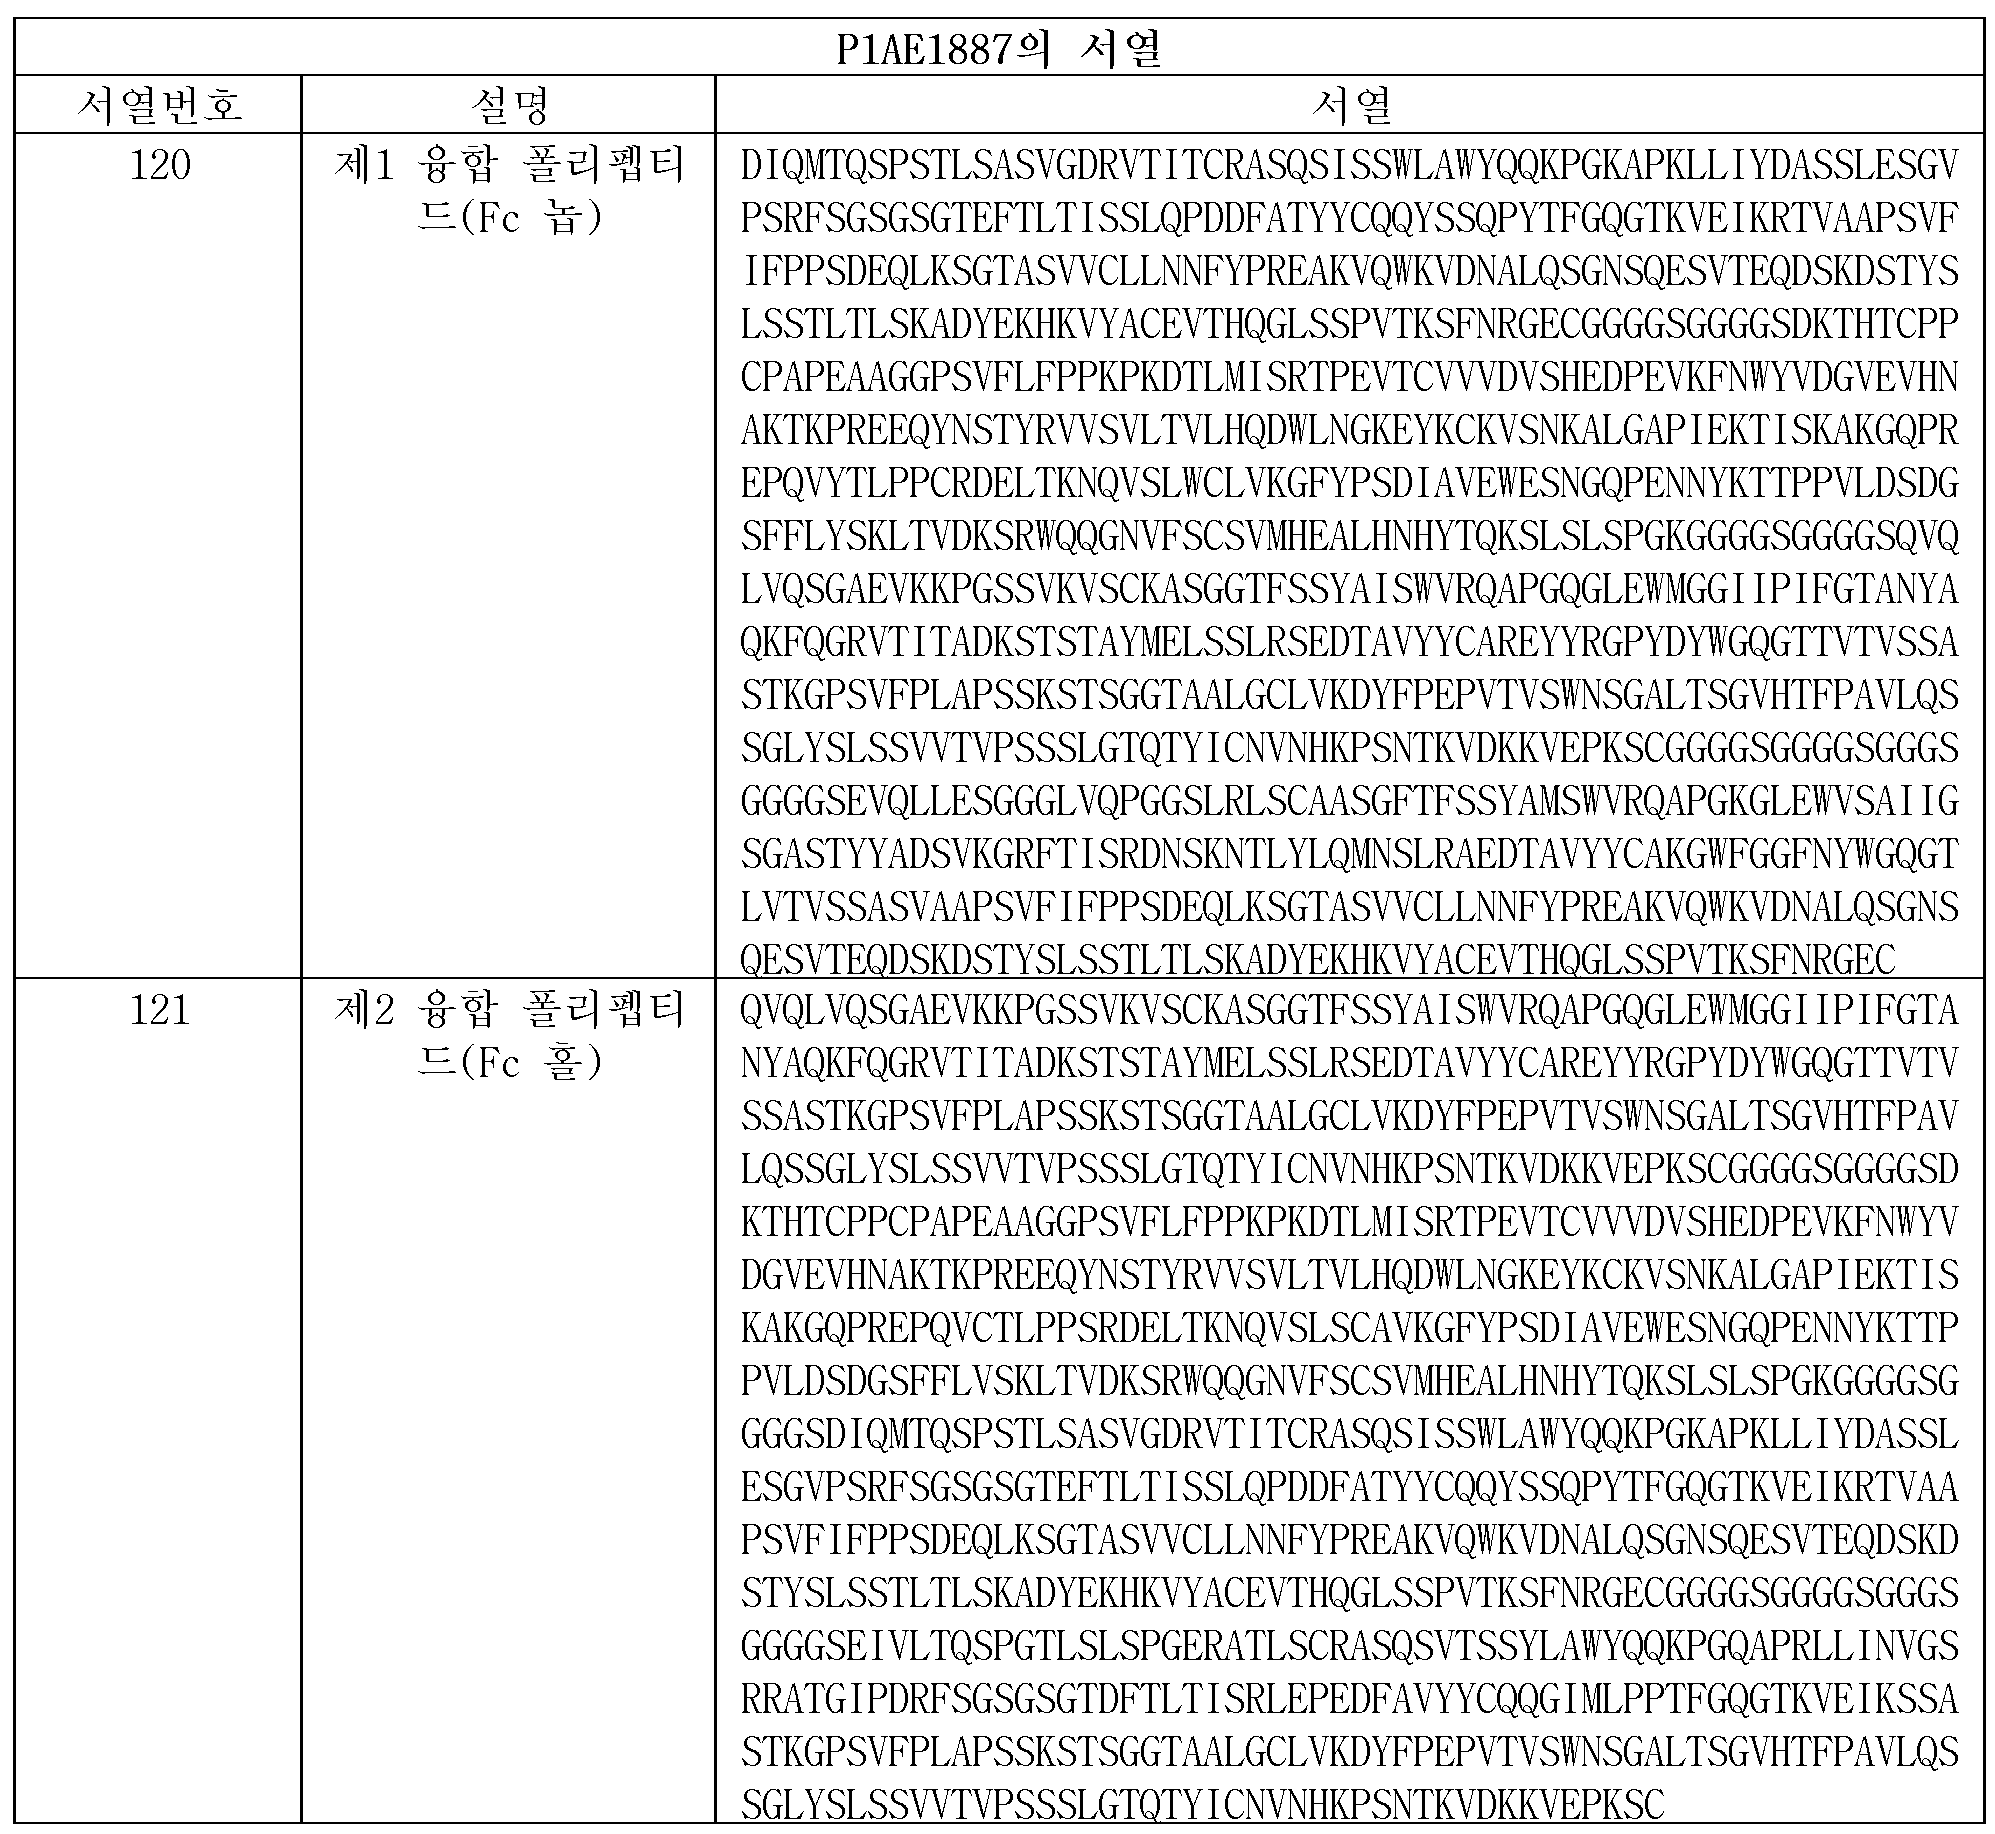
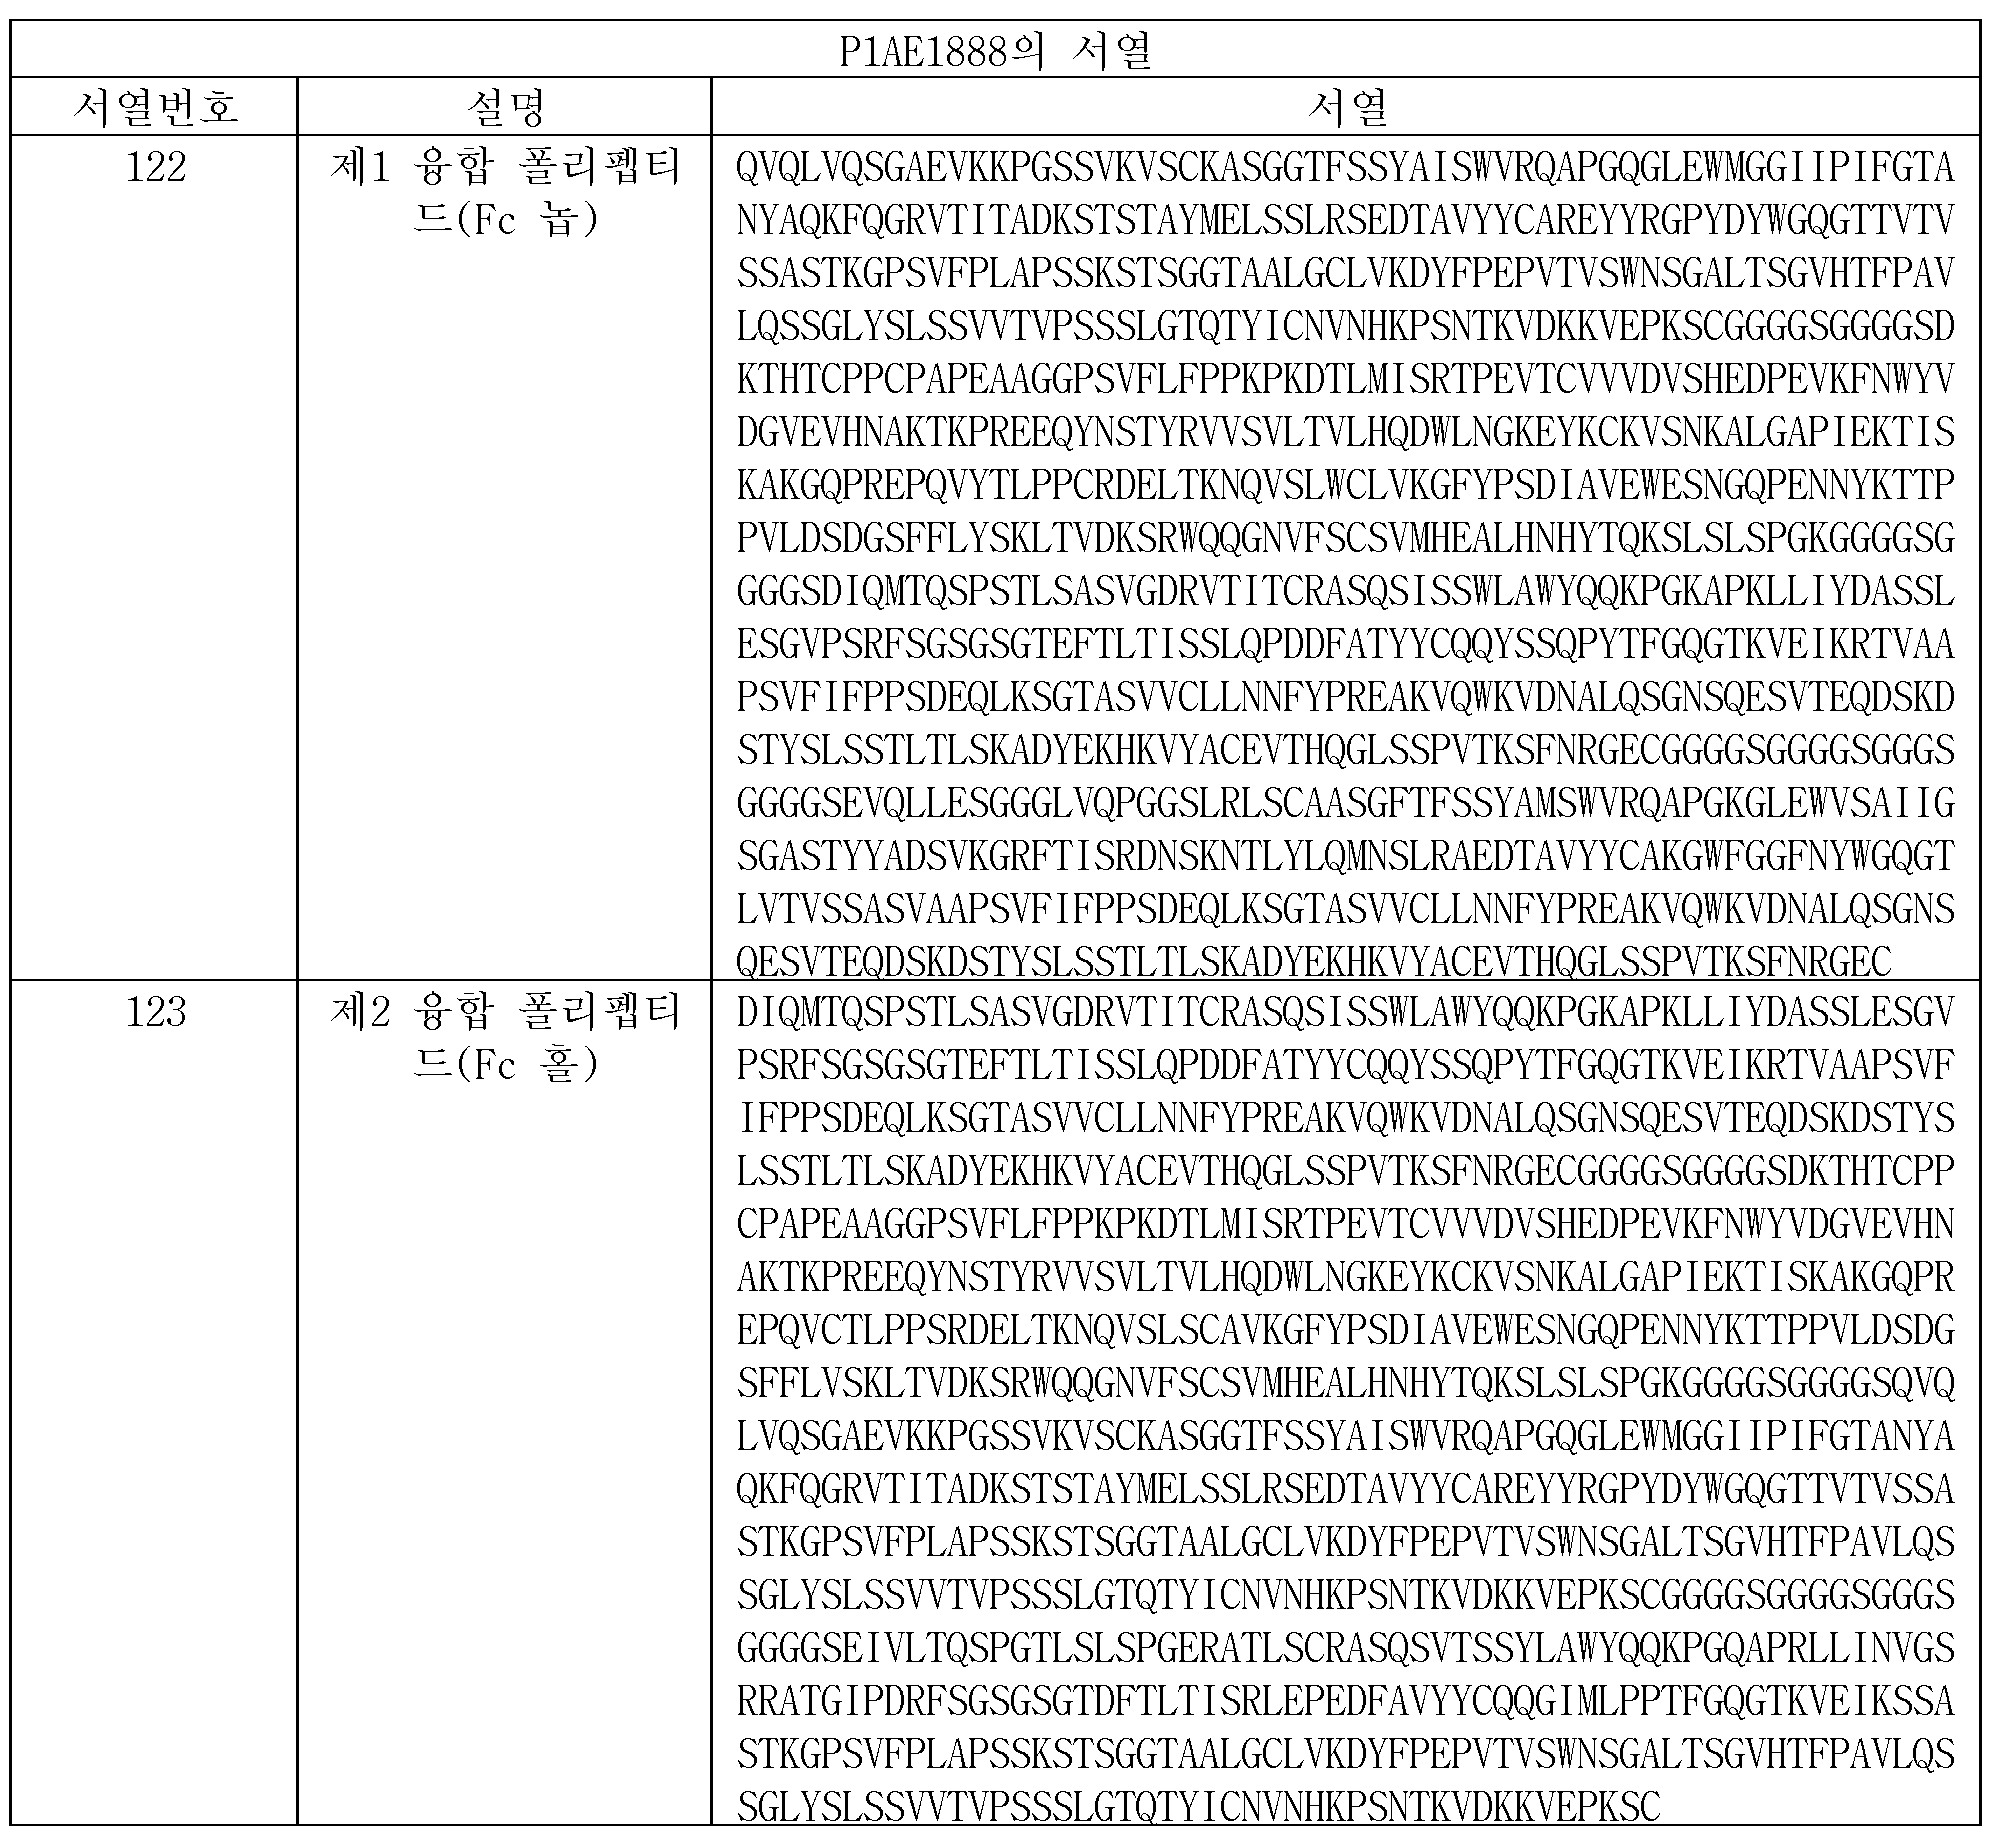
또한, 본 발명은
(a) 서열번호 116의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 117의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(b) 서열번호 118의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 119의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(c) 서열번호 120의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 121의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(d) 서열번호 122의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 123의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
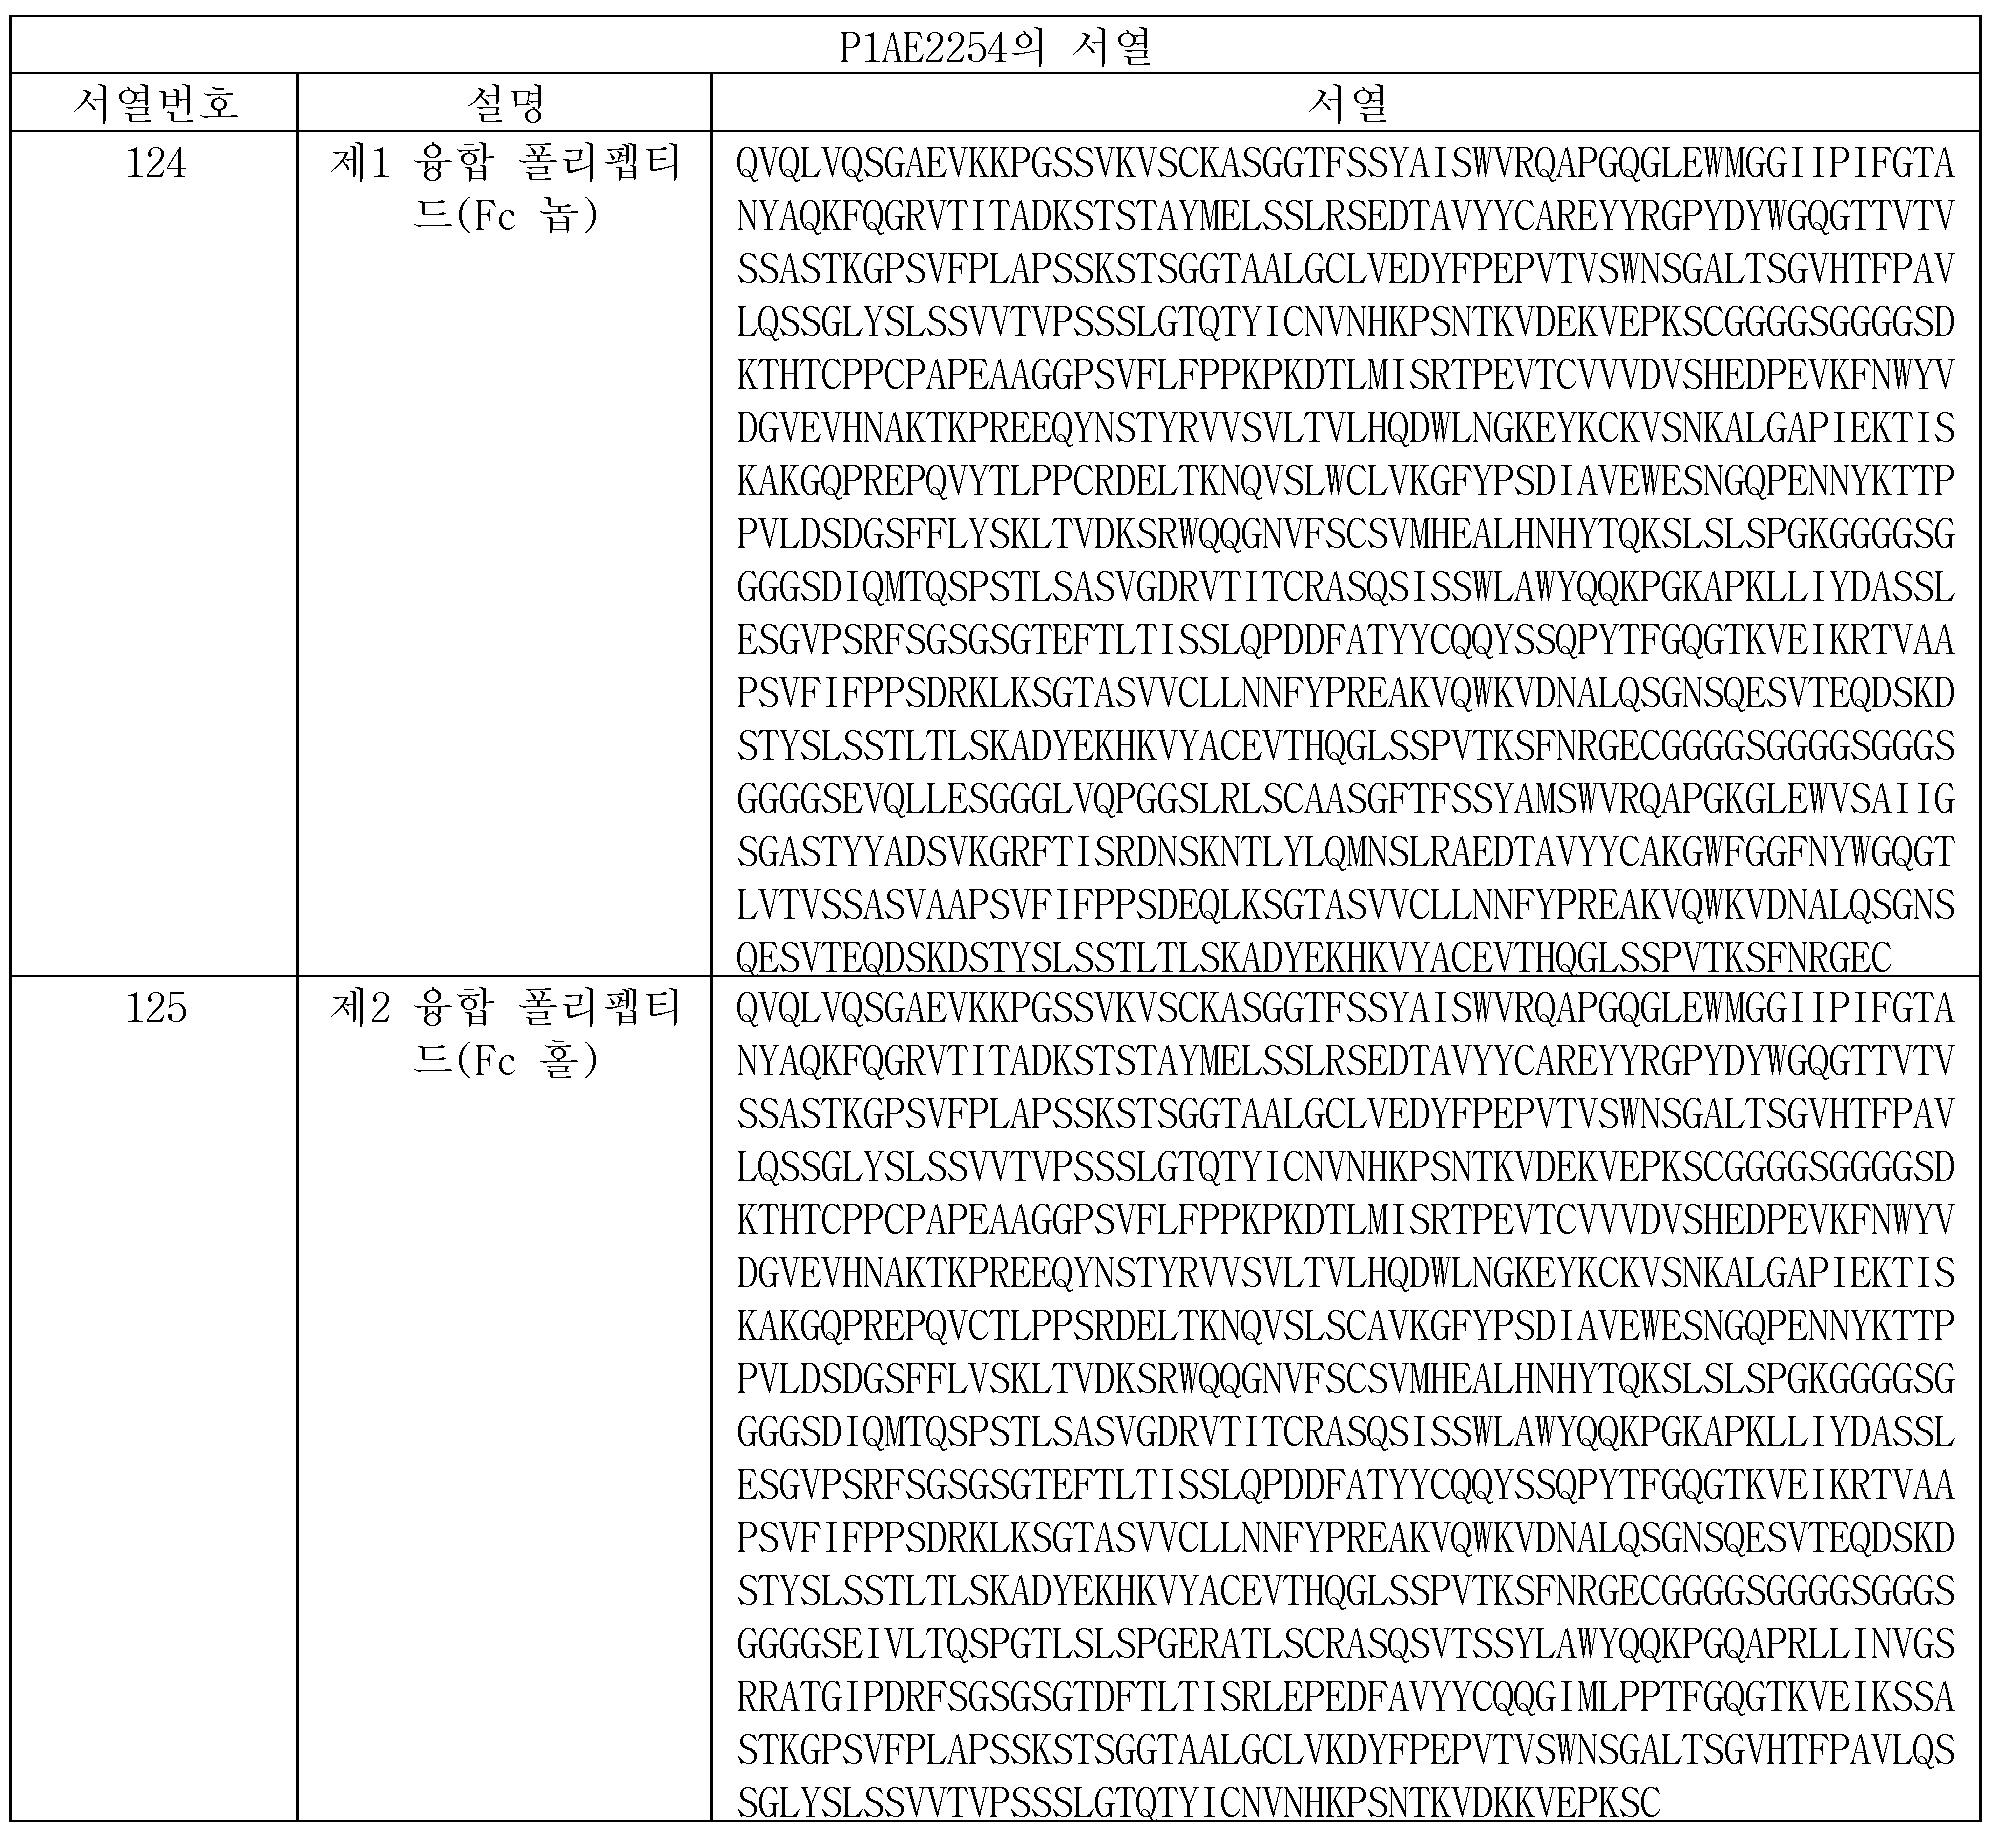
(e) 서열번호 124의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 125의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(f) 서열번호 126의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 서열번호 127의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 128의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 경쇄;
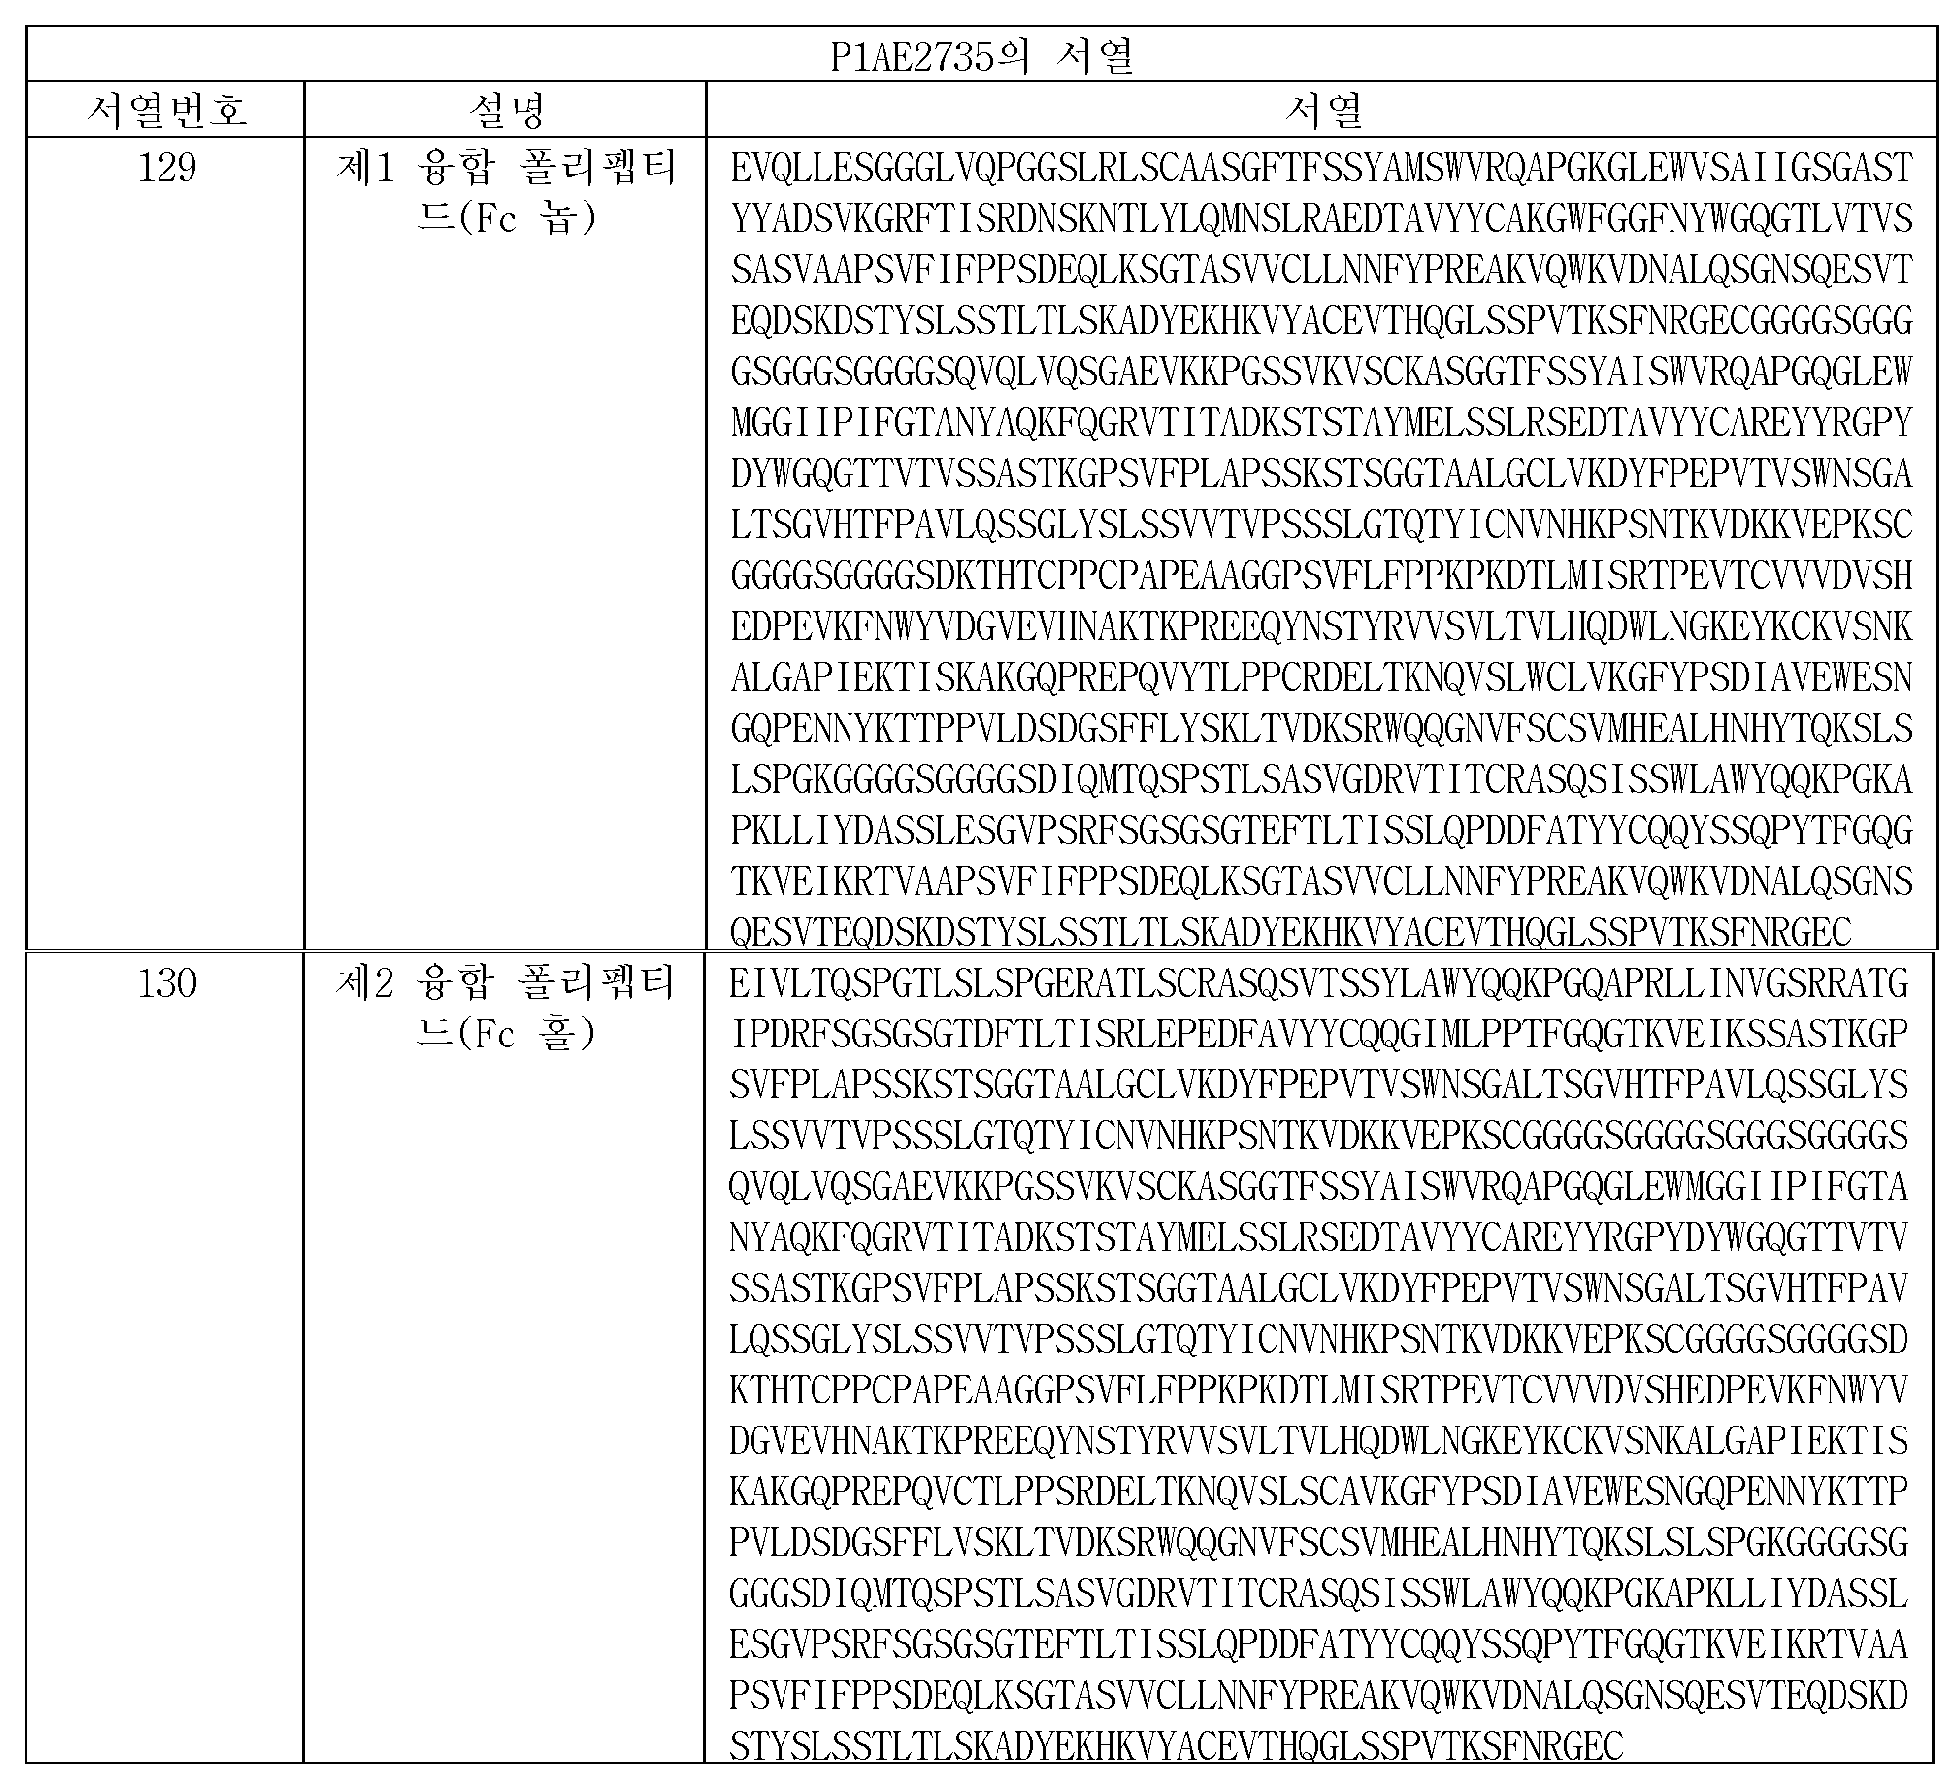
(g) 서열번호 129의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 130의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
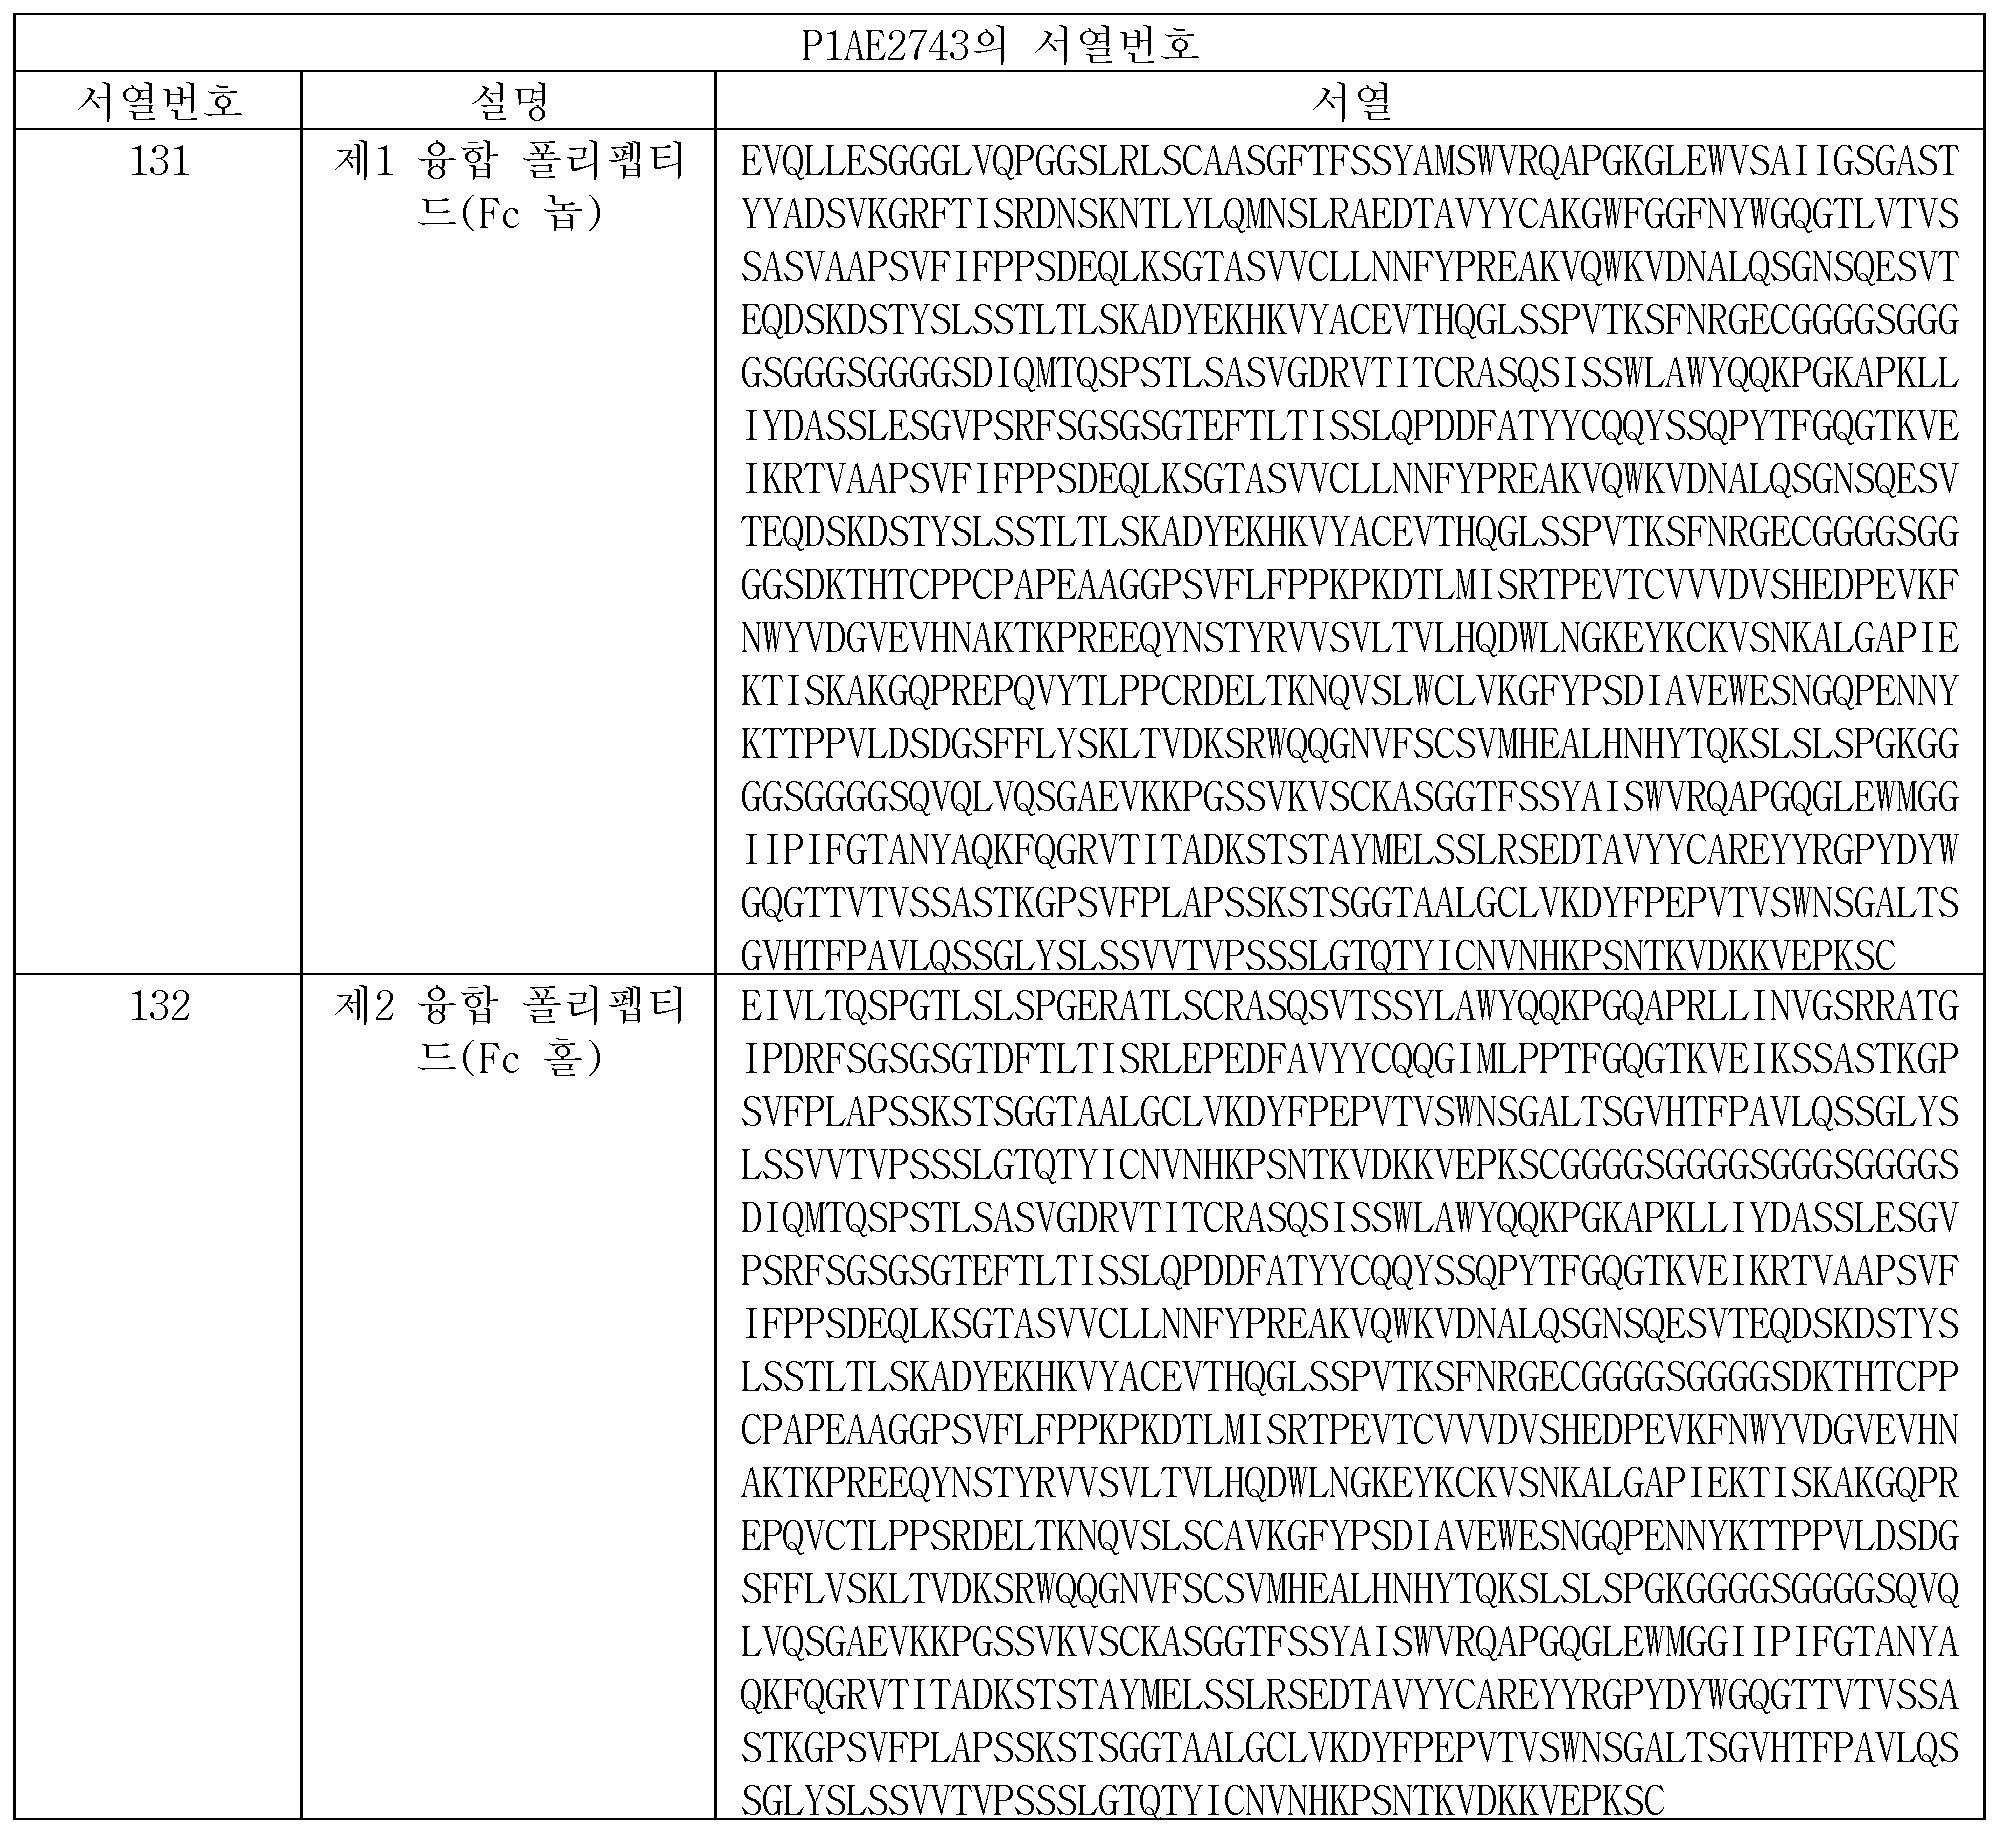
(h) 서열번호 131의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 132의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드; 또는
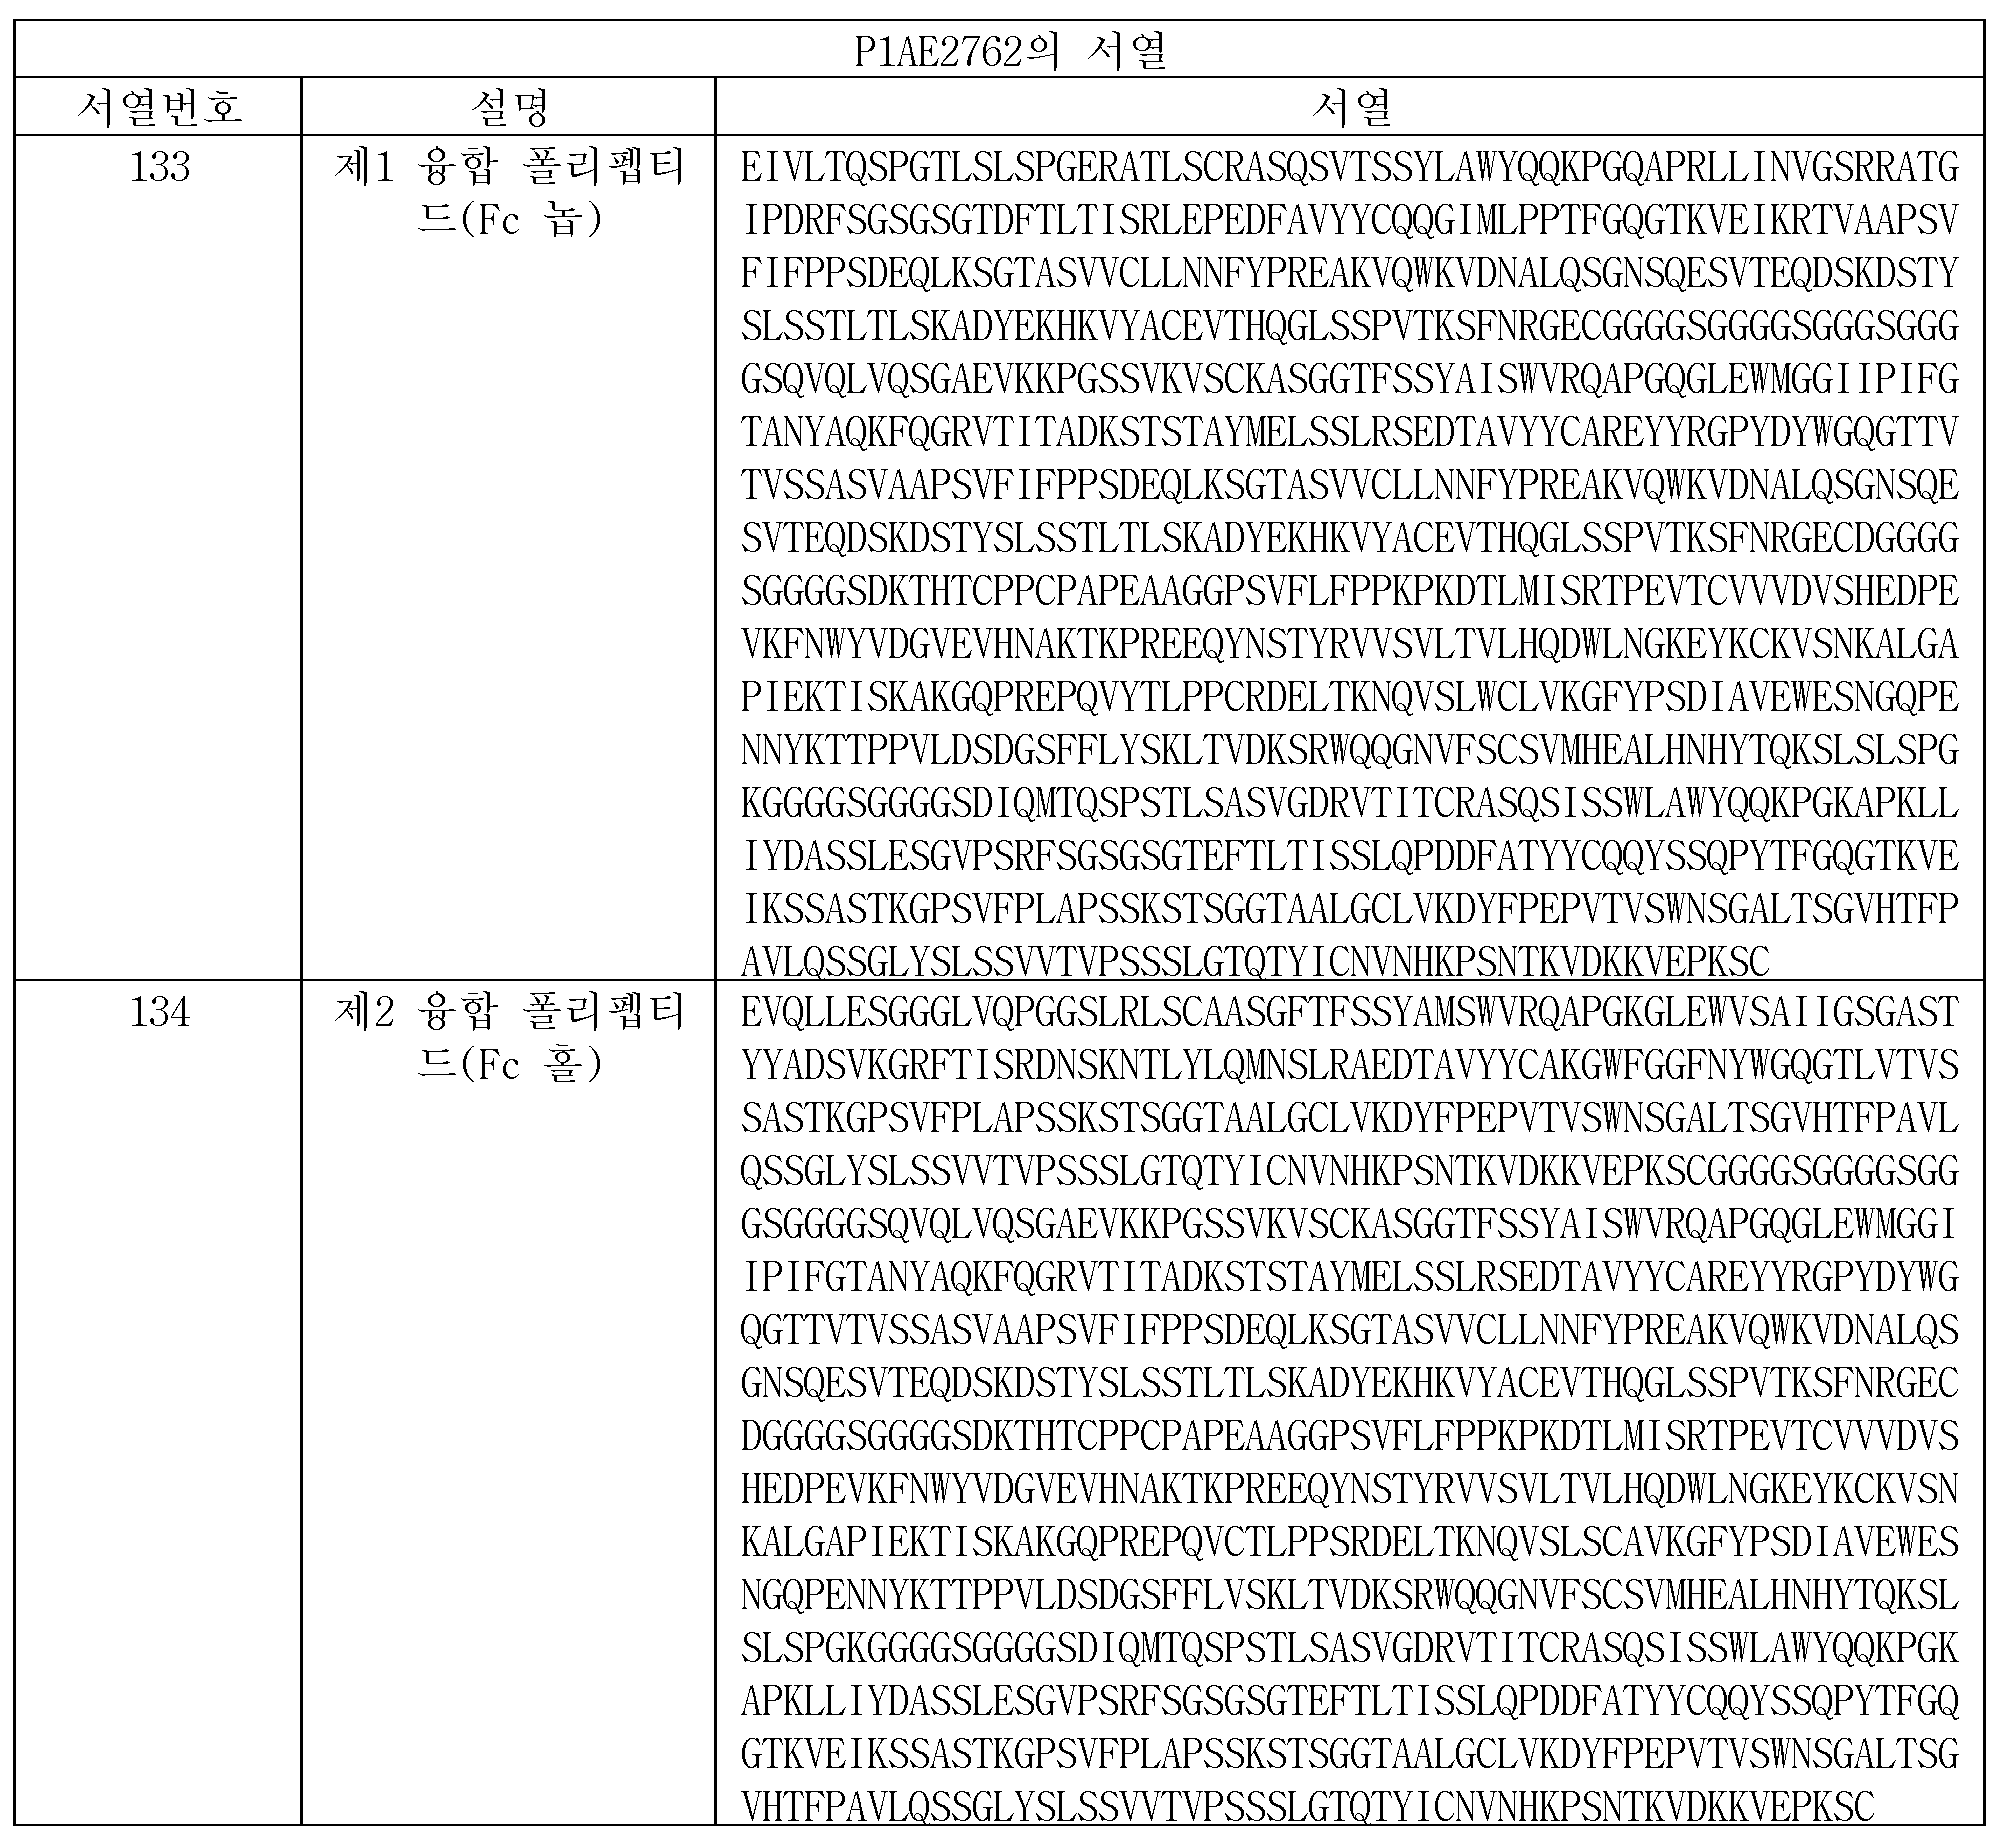
(i) 서열번호 133의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 134의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드를 포함하는 이중특이성 항체를 제시한다.
일부 양상에서, 공동자극 TNF 수용체가 4-1BB인 이중특이성 항체가 제시된다. 하나의 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 4-1BB에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 본 발명의 이중특이성 항체는 4-1BB에 특이적으로 결합가능한 2개의 항원을 포함한다.
일부 양상에서, 4-1BB에 특이적으로 결합가능한 항원 결합 도메인은 (i) 서열번호 135의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 136의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 137의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VH4-1BB), 및 (iv) 서열번호 138의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 139의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 140의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VL4-1BB)를 포함한다. 하나의 양상에서, 4-1BB에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 141의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VH4-1BB), 및 서열번호 142의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VL4-1BB)를 포함한다.
특히, 본 발명은
(a) 서열번호 143의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 144의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드; 또는
(b) 서열번호 145의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 146의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드
를 포함하는 이중특이성 항체를 제시한다.
일부 양상에서, 공동자극 TNF 수용체가 CD40인, 이중특이성 항체가 제시된다. 하나의 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 CD40에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 본 발명의 이중특이성 항체은 CD40에 특이적으로 결합가능한 2개의 항원 결합 도메인을 포함한다.
일부 양상에서, CD40에 특이적으로 결합가능한 항원 결합 도메인은 (i) 서열번호 147의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 148의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 149의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHCD40), 및 (iv) 서열번호 150의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 151의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 152의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLCD40)를 포함한다. 하나의 양상에서, CD40에 특이적으로 결합가능한 항원 결합 도메인이 서열번호 153의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 154의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VLCD40)를 포함한다.
또 다른 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인은
(i) 서열번호 167, 서열번호 168, 서열번호 169 및 서열번호 170으로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 171, 서열번호 172, 서열번호 173 및 서열번호 174로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 경쇄 가변부(VLCD40); 또는
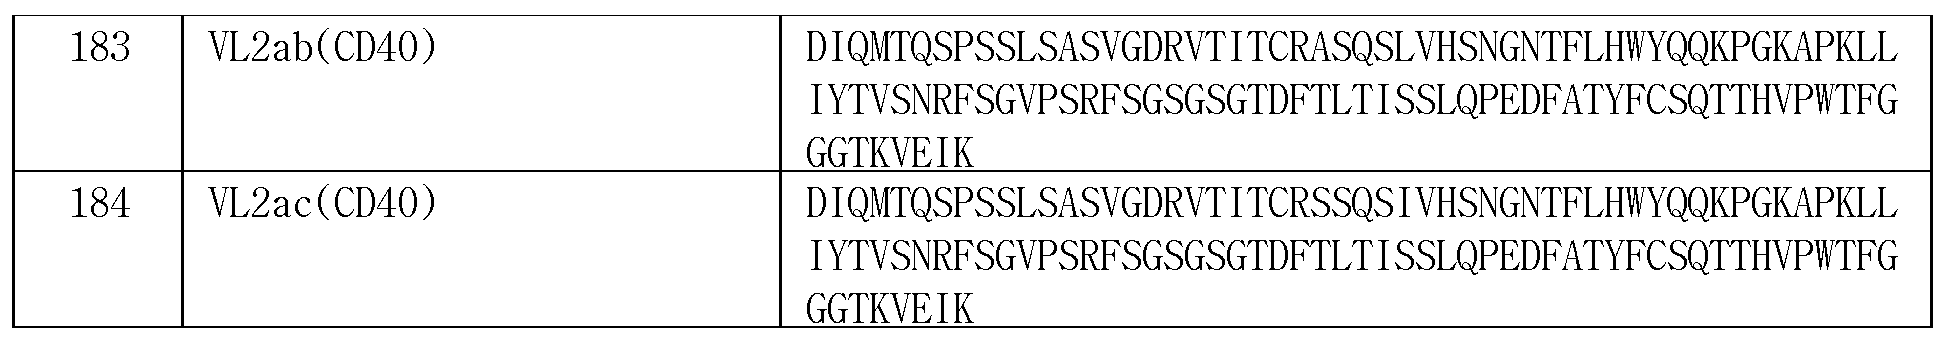
(ii) 서열번호 175, 서열번호 176, 서열번호 177, 서열번호 178, 서열번호 179 및 서열번호 180으로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 181, 서열번호 182, 서열번호 183 및 서열번호 184로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 경쇄 가변부(VLCD40)를 포함하는 CD40에 특이적으로 결합가능한 항원 결합 도메인이다.
특히, 본 발명은
(a) 서열번호 155의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 156의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(b) 서열번호 157의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 158의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(c) 서열번호 159의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 160의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(d) 서열번호 161의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 162의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드;
(e) 서열번호 163의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 164의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드; 또는
(f) 서열번호 165의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 166의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 융합 폴리펩티드를 포함하는 이중특이성 항체를 제시한다.
또한, 본 발명은 본 발명의 이중특이성 항체를 암호화하는 단리된 핵산을 제시한다. 또한, 본 발명의 핵산을 포함하는 발현 벡터 및 본 발명의 단리된 핵산 또는 발현 벡터를 포함하는 숙주 세포가 제시된다. 또한, 이중특이성 항체의 발현에 적합한 조건하에 본 발명의 숙주 세포를 배양하는 단계를 포함하는 이중특이성 항체를 제조하는 방법이 포함된다. 또한, 상기 방법은 이중특이성 항체를 단리하는 단계를 포함할 수 있다.
또한, 본 발명은 본 발명의 이중특이성 항체 및 하나 이상의 약학적으로 허용되는 부형제를 포함하는 약학 조성물을 제시한다.
또한, 본 발명은 약제로서 사용하기 위한 본 발명의 이중특이성 항체 또는 본 발명의 약학 조성물을 제시한다. 또한, 보다 특히, 암 또는 감염성 질환의 치료에 사용하기 위한 본 발명의 이중특이성 항체가 제시된다. 특히, 암 치료에 사용하기 위한 본 발명의 이중특이성 항체가 제시된다.
추가의 양상에서, 본 발명의 이중특이성 항체 또는 본 발명의 약학 조성물의
(i) T 세포 반응 촉진;
(ii) 활성화된 T 세포의 생존 지원;
(iii) 감염 치료;
(iv) 암 치료;
(v) 암의 진행의 지연; 또는
(vi) 암을 앓는 환자의 생존 연장
에 사용하기 위한 약제의 제조에서의 용도가 제시된다.
또한, 본 발명은 본 발명의 효과량의 이중특이성 항체 또는 본 발명의 약학 조성물을 개체에게 투여하는 단계를 포함하는 암 또는 감염성 질환을 앓는 상기 개체를 치료하는 방법을 제시한다.
또한, 본 발명은 본 발명의 이중특이성 항체 또는 본 발명의 약학 조성물의 세포독성 T 세포 활성을 상향조절하거나 연장하기 위한 약제의 제조에서의 용도를 제시한다. 또한, 효과량의 본 발명의 이중특이성 항체 또는 본 발명의 약학 조성물을 개체에게 투여하는 단계를 포함하는 암을 앓는 상기 개체의 세포독성 T 세포 활성을 상향조절하거나 연장하는 방법을 제시한다. 본 발명의 다양한 양상에 따른 일부 양태에서, 개체는 포유동물, 특히 인간이다.
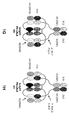
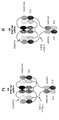
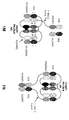
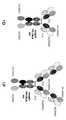
도 1A, 1B, 1C 및 1D는 본 발명의 컨터체가 조합되는 예를 도시한 것이다. 도 1A에서, 컨터체는 (N에서 C 방향으로) 제1 표적에 특이적으로 결합가능한 Fab의 제1 절반(중쇄 Fab)에 펩티드 연결자(흑색 선)를 통해 스페이서 도메인에 연결되고 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 Fab의 제2 절반(경쇄 Fab)에 연결되고 제2 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VH-C카파)에 연결된 것을 포함하는 제1 융합 폴리펩티드; 및 (N에서 C 방향으로) 제1 표적에 특이적으로 결합가능한 Fab의 제1 절반(중쇄 Fab)에 펩티드 연결자(흑색 선)를 통해 스페이서 도메인에 연결되고 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 Fab의 제2 절반(경쇄 Fab)에 연결되고 제2 표적에 특이적으로 결합가능한 교차 Fab의 제2 절반(VL-CH1)에 연결된 것을 포함하는 제2 융합 폴리펩티드로 이루어진다. 2개의 스페이서 도메인은 서로 상이하고 제1 및 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 이러한 유형의 컨터체의 예는 CD134-0093(실시예 2.1 참고)이다. 도 1B에서, 컨터체는 (N에서 C 방향으로) 제1 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VH-C카파)에 펩티드 연결자(흑색 선)를 통해 스페이서 도메인에 연결되고 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 교차 Fab의 제2 절반(VL-CH1)에 연결되고 제2 표적에 특이적으로 결합가능한 Fab의 제1 절반(경쇄 Fab)에 연결된 것을 포함하는 제1 융합 폴리펩티드; 및 (N에서 C 방향으로) 제1 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VH-C카파)에 펩티드 연결자(흑색 선)를 통해 스페이서 도메인에 연결되고 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 교차 Fab의 제2 절반(VL-CH1)에 연결되고 제2 표적에 특이적으로 결합가능한 Fab의 제2 절반(중쇄 Fab)에 연결된 것을 포함하는 제2 융합 폴리펩티드로 이루어진다. 2개의 스페이서 도메인은 서로 상이하고 제1 및 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 이러한 유형의 컨터체의 예는 CD134-0094(실시예 2.2 참고)이다. 도 1C에서, 컨터체는 (N에서 C 방향으로) 제1 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VL-C카파)에 펩티드 연결자(흑색 선)를 통해 스페이서 도메인에 연결되고 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 Fab의 제2 절반(VH-CH1)에 연결되고 제2 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VH-C카파)에 연결된 것을 포함하는 제1 융합 폴리펩티드; 및 (N에서 C 방향으로) 제1 표적에 특이적으로 결합가능한 Fab의 제1 절반(VL-C카파)에 펩티드 연결자(흑색 선)를 통해 스페이서 도메인에 연결되고 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 Fab의 제2 절반(VH-CH1)에 연결되고 제2 표적에 특이적으로 결합가능한 교차 Fab의 제2 절반(VL-CH1)에 연결된 것을 포함하는 제2 융합 폴리펩티드로 이루어진다. 2개의 스페이서 도메인은 서로 상이하고 제1 및 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 이러한 유형의 컨터체의 예는 P1AE0821(실시예 2.7 참고)이다. 도 1D에서, 컨터체는 (N에서 C 방향으로) 제2 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VH-C카파)에 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VH-C카파)에 펩티드 연결자(흑색 선)를 통해 연결된 스페이서 도메인에 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 교차 Fab의 제2 절반(VL-CH1)에 연결된 것을 포함하는 제1 융합 폴리펩티드; 및 (N에서 C 방향으로) 제2 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VL-CH1)에 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 교차 Fab의 제1 절반(VH-C카파)에 펩티드 연결자(흑색 선)를 통해 스페이서 도메인에 연결되고 펩티드 연결자(흑색 선)를 통해 제1 표적에 특이적으로 결합가능한 교차 Fab의 제2 절반(VH-CH1)에 연결된 것을 포함하는 제2 융합 폴리펩티드로 이루어진다. 2개의 스페이서 도메인은 서로 상이하고 제1 및 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 이러한 유형의 컨터체의 예는 P1AE2735(실시예 1.14 참고)이다.
도 1E는 컨터체 CD134-0093(실시예 2.1)의 조립된 구조의 개략도를 도시한 것이다.
도 1F는 컨터체 CD134-0094(실시예 2.2)의 조립된 구조의 개략도를 도시한 것이다.
도 1G는 컨터체 P1AE0085 및 P1AE0086(실시예 2.3 및 2.4)의 조립된 구조의 개략도를 도시한 것이다. 제2 표적에 특이적으로 결합가능한 항원 결합 도메인(교차 Fab)은 분자의 기하구조를 변화시키는 긴 펩티드 연결자를 통해 연결된다.
도 1H는 컨터체 P1AE0087 및 P1AE0839(실시예 2.5 및 2.6)의 조립된 구조의 개략도를 도시한 것이다. 이러한 경우, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인은 Fab이고, 제1 표적에 특이적으로 결합가능한 항원결합 도메인 둘다는 교차 Fab이다.
도 1I는 컨터체 P1AE0821(컨터체 11, 실시예 2.7)의 조립된 구조의 개략도를 도시한 것이다.
도 1J는 컨터체 P1AE1122(컨터체 1, 실시예 2.8)의 조립된 구조의 개략도를 도시한 것이다.
도 1K는 컨터체 P1AE1887(컨터체 3, 실시예 2.10)의 조립된 구조의 개략도를 도시한 것이다.
도 1L은 컨터체 P1AE2254(컨터체 5, 실시예 2.12)의 조립된 구조의 개략도를 도시한 것이다. OX40의 VL 및 VH에 융합된 CH 및 C카파 각각에서, 아미노산 돌연변이(이른바 하전된 잔기(charged residue))가 도입되어 벤스 존스(Bence Jones) 단백질의 생성을 억제하고 정확한 짝지음을 더욱 용이하게 한다.
도 1M은 컨터체 P1AE2340(컨터체 6, 실시예 2.12)의 조립된 구조의 개략도를 도시한 것이다. 이러한 경우, 분자는 2개의 융합 단백질 및 경쇄로 구성된다.
도 1N은 컨터체 P1AE2735(컨터체 8, 실시예 2.14)의 조립된 구조의 개략도를 도시한 것이다.
도 1O는 OX40에 대한 2가 결합 및 FAP에 대한 1가 결합을 갖는 2+1 OX40 x FAP 이중특이성 항체(양성 대조군 분자)의 개략도를 도시한 것이다. 동일한 구조를 갖는 음성 대조군 분자를 제조하고, 여기서 FAP 결합 도메인을 DP47 생식세포계로 대체하였다(2+1 OX40 x DP47 항체).
도 1P는 OX40에 대한 4가 결합 및 FAP에 대한 1가 결합을 갖는 4+1 OX40 x FAP 이중특이성 항체의 개략도를 도시한 것이다. 이러한 대조군 분자는 실시예 2.18에 더 상세히 설명된다.
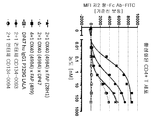
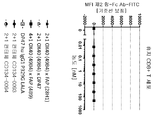
도 2a, 2b, 2c 및 2d는 활성화된 CD4+ 및 CD8+ T 세포(각각 도 2a 및 2c) 및 휴지 CD4+ 및 CD8+ T 세포(각각 도 2a 및 2c)에 대한 OX40 x FAP 이중특이성 항체의 결합을 도시한 것이다. 4가 4+1 OX40 x FAP(4B9) 이중특이성 항체는 CD4+ 및 CD8+ T 세포에 대해 가장 강한 결합을 나타냈다. 2+1 형식 2+1 OX40(49B4) x FAP(28H1) 및 2+1 OX40(49B4) x DP47은 중간 정도의 결합을 나타냈다. 컨터체 CD134-0093은 2+1 형식보다 강한 결합을 나타냈고, 컨터체 CD134-0094은 덜 강하게 결합하였다. CD4+ T 세포에 대한 결합은 CD8+ T 세포에 대한 결합보다 훨씬 강했다. 음성 대조군 DP47 huIgG1 P329GLALA는 CD4+ 또는 CD8+ T 세포에 결합하지 않았다. 휴지 CD4+ 또는 CD8+ T 세포에 결합한 분자는 없었다(도 2b 및 2d).
도 2e, 2f, 2g 및 2h는 컨터체 P1AE0085, P1AE0086 및 P1AE0087에 의해 수득된 결과를 도시한 것이다. 2+1 형식 OX40(49B4) x FAP(28H1), OX40(49B4) x FAP(4B9) 및 OX40(49B4) x DP47 모두는 활성화된 CD4+ 및 CD8+ T 세포(각각 도 2E 및 2g)에 대해 유사하게 우수한 결합을 나타냈고, OX40에 대한 결합은 컨터체 분자, 특히 컨터체 P1AE0087에 대해서는 부분적으로 약화되었다. DP47 huIgG1 P329GLALA는 예상한데로 CD4+ 또는 CD8+ T 세포에 결합하지 않았다. 시험된 어떠한 세포에 대해서도 휴지 CD4+ 또는 CD8+ T 세포(각각 도 2f 및 2h)에 대한 결합이 관찰되지 않았다.
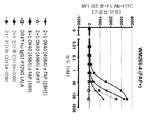
도 3a, 3b, 3c 및 3d는 인간 FAP 발현 종양 세포에 대한 결합을 도시한 것이다. 제1 실험에서, 컨터체 CD134-0093 및 CD134-0094를 대조군 분자와 비교하였다. WM266-4(FAP+ 양성) 및 A549NLR(FAP 음성) 종양 세포에 대한 결합을 각각 도 3a 및 3b에 나타냈다. 모든 OX40 x FAP 이중특이성 항체는 인간 FAP 표적 세포에 효과적으로 결합하였다. 4가 4+1 OX40 x FAP(4B9, FAP에 대한 높은 친화도) 이중특이성 항체는 FAP+ 세포에 가장 강하게 결합하였고, 컨터체 CD134-0093, 컨터체 CD1334-0094 및 2+1 OX40(49B4) x FAP(28H1) 이중특이성 항체가 이의 뒤를 이었다. 비표적화된 2+1 OX40(49B4) x DP47 및 음성 대조군(DP47 huIgG1 P329GLALA)은 어떠한 FAP+ 세포에도 결합하지 않았다. 도 3c 및 3d는 컨터체 P1AE0085, P1AE0086 및 P1AE0087의 NIH/3T3huFAP 클론 19(FAP+)(도 3c) 및 A549NLR(FAP-) 종양 세포(도 3d)에 대한 결합을 도시한 것이다. 모든 FAP-표적화된 항-OX40 항체는 인간 FAP 발현 표적 세포에 효과적으로 결합하였다. 컨터체 분자의 결합은 이의 각각의 대조군보다 약간 더 약화되었다. 또한, 비표적화된 OX40(49B4) x DP47 및 음성 대조군(DP47 huIgG1 P329GLALA)은 FAP+ 세포에 대한 결합을 나타내지 않았다.
도 4a, 4b, 4c, 4d, 4e 및 4f는 상이한 유형의 가교결합에 의한 NFκB 활성화를 도시한 것이다. FAP 발현 세포(NIH/3T3 huFAP 클론 19)를 가교결합제로서 사용하여, FAP 표적화된 2+1 OX40(49B4) x FAP(28H1) 구조물은 가장 강한 NFκB 활성화를 나타냈고, CD134-0093 및 CD134-0094가 이의 뒤를 이었는데, CD134-0094는 CD134-0093보다 약간 더 강한 활성화를 나타냈다. 비표적화되고 이에 따라 가교결합되지 않은 2 비표적화 2+1 OX40(49B4) x DP47은 약한 NFκB 활성화를 나타냈다(도 4a). 2차의 항-huIgG1 Fcγ 특이성 항체를 가교결합제로서 사용할 때, 2개의 2+1 구조물 OX40(49B4) x FAP(28H1) 및 OX40(49B4) x DP47은 유사하게 거동하였다. 컨터체 CD134-0093 및 CD134-0094는 마찬가지로 유사하게 거동하였지만 2+1 구조물보다는 낮았다(도 4b). 최소의 NFκB 활성화가 가교결합제를 사용하지 않음으로써 수득되었다. 2+1 구조물 OX40(49B4) x FAP(28H1) 및 OX40(49B4) x DP47은 중간 정도의 NFκB 활성화를 나타냈고, 훨씬 덜한 효능의 컨터체 CD134-0093 및 CD134-0094가 이의 뒤를 이었다. DP47 huIgG1 P329GLALA는 NFκB 활성화를 유도하지 않았다(도 4c). 도 4d 내지 4f는 상이한 유형의 가교결합에 의해 NFκB 활성화를 유도하는 컨터체 P1AE0085, P1AE0086 및 P1AE0087의 능력을 도시한 것이다. 가교결합의 부재에서, 단지 약한 신호만이 최고 항체 농도에서 검출될 수 있었다(도 4d). 3개의 컨터체 분자는 인간 FAP 발현 세포에 의해 가교결합될 때 FAP 표적화된 2+1 형식 OX40(49B4) x FAP(28H1) 및 OX40(49B4) x FAP(4B9)와 매우 유사한 NFκB 활성화를 유도하였다(도 4e). 2차 항체 가교결합의 존재에서, 3개의 컨터체 분자 모두는 2+1 대조군 분자보다 약간 더 낮은 NFκB 활성화를 유도하였다(도 4f). DP47 huIgG1 P329GLALA는 NFκB 활성화를 유도하지 않았다.
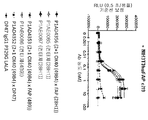
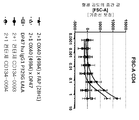
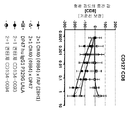
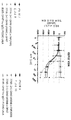
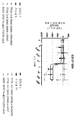
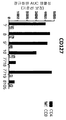
도 5a, 5b, 5c, 5d, 5e 및 5f는 부분최적화 TCR 유발된 휴지 인간 PBMC 및 세포 표면 FAP에 의한 초가교결합(hyper-crosslinking)의 OX40 매개된 공동자극을 도시한 것이다. 도 5a 및 5b는 FACS 분석에 의해 작은 각도로 산란된 광의 강도로서 측정된 부분최적화 CD3 자극 후 FSC-A(전방 산란(FCS) 펄스의 면적)(각각 CD4 및 CD8 T 세포의 크기)를 도시한 것이다. FAP 표적화된 2+1 구조물 OX40(49B4) x FAP(28H1)은 크기의 중간 정도의 증가를 나타냈고, 컨터체 CD134-0093는 더 강한 증가를 나타냈다. 비표적화된 2+1 OX40(49B4) x DP47, 컨터체 CD134-0094 및 음성 대조군(DP47 huIgG1 P329GLALA)은 CD4 또는 CD8 T 세포에서 크기를 변화시키기 않았다. 도 5c 및 5d는 표면 마커 CD25를 사용하여 CD4 및 CD8 T 세포의 활성화를 도시한 것이다. CD4 T 세포의 경우(도 5c), 컨터체 CD134-0093 및 CD134-0094가 가장 높은 활성화를 나타냈고, 효능이 다소 덜한 표적화된 2+1 OX40(49B4) x FAP(28H1)가 이의 뒤를 이었다. 비표적화된 OX40(49B4) x DP47 및 음성 대조군은 기준선-보정 후 어떠한 활성화도 나타내지 않았다. CD8 T 세포의 경우(도 5d), 컨터체 CD134-0094는 2+1 OX40(49B4) x FAP(28H1) 및 CD134-0093보다 강한 활성화를 나타냈다. 도 5e 및 5f는 IL-7Rα(CD127) 하향조절에 대한 활성화를 도시한 것이다. 컨터체 CD134-0093은 CD4 및 CD8 T 세포에 대해 가장 강한 CD127 하향조절을 나타냈고, 2+1 OX40(49B4) x FAP(28H1) 및 컨터체 CD134-0094가 이의 뒤를 이었다.
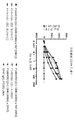
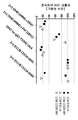
도 6은 CD4 및 CD8 T 세포에서 FCS-A 및 CD25에 대한 정규화된 곡선하 면적(AUC) 값을 도시한 것이다. 채색된 기호는 CD4 T 세포를 표시하고, 빈 기호는 CD8 T 세포를 표시한다. 모든 값을 컨터체 CD134-0093의 최고 AUC 값(=100%)에 대해 정규화하였다. 비표적화된 2+1 구조물 OX40(49B4) x DP47은 CD4 및 CD8 T 세포에서 단지 최소의 활성화만을 나타냈고, FAP 표적화된 2+1 구조물 OX40(49B4) x FAP(28H1)은 CD4 및 CD8 T 세포에서 FSC-A 및 CD25에 대해 더 높은 효능(60 내지 100의 정규화된 값)을 나타냈으나, CD134-0093보다는 덜한 효능을 나타냈다. 컨터체 CD134-0094의 경우, CD4 및 CD8 T 세포에 대한 CD25 MFI AUC 값만이 CD134-0093과 유사한 활성화를 나타냈다.
도 7a, 7b, 7c 및 7d는 부분최적화 TCR 유발된 PBMC 및 세포 표면 FAP에 의해 초가교결합의 OX40 매개된 공동자극에 대한 컨터체 P1AE0085, P1AE0086 및 P1AE0087의 효과를 도시한것이다. 도 7a 및 7b는 부분최적화 CD3 자극 후 FSC-A(각각 CD4 및 CD8 T 세포의 크기)를 도시한 것이다. 도 7c 및 7d는 표면 마커 CD25의 발현을 사용하여 CD4 및 CD8 T 세포 각각의 활성화를 도시한 것이다. 모든 FAP 표적화된 분자(대조군 및 모든 컨터체 분자)는 CD4 및 CD8 T 세포에서 전방 산란 면적 및 CD25 발현에서 양-의존적 증가를 유도하였다. 비표적화된 2+1 컨터체 OX40(49B4) x DP47 및 음성 대조군(DP47 huIgG1 P329GLALA)은 기준선-보정 후 활성화를 나타내지 않았다.
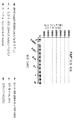
도 8a, 8b, 8c 및 8d는 활성화된 CD4+ T 세포에 대한 상이한 OX40 x FAP 컨터체의 결합을 도시한 것이다. 비표적화된 2+1 구조물 OX40(49B4) x DP47을 양성 대조군으로서 사용하고 DP47 huIgG1 P329GLALA를 음성 대조군으로서 사용하였다. 도 8a는 컨터체 1(P1AE1122), 컨터체 2(P1AE1942) 및 컨터체 3(P1AE1887)를 도시한 것이고, 도 8b는 컨터체 4(P1AE1888), 컨터체 5(P1AE2254) 및 컨터체 6(P1AE2340)의 결합을 도시한 것이다. 도 8c는 컨터체 7(P1AE0086) 및 컨터체 8(P1AE2735)의 결합을 도시한 것이고, 도 8d는 컨터체 9(P1AE2743) 및 컨터체 10(P1AE2762)의 결합을 도시한 것이다. 도 9a, 9b, 9c 및 9d는 각각 휴지 CD4 T 세포에 결합된 시험된 컨터체가 없음을 도시한 것이다. 도 10a, 10b, 10c 및 10d는 활성화된 CD8+ T 세포에 대한 동일한 OX40 x FAP 컨터체의 결합을 도시한 것이다. 비표적화된 2+1 구조물 OX40(49B4) x DP47은 양성 대조군으로서 사용되었고, DP47 huIgG1 P329GLALA는 음성 대조군으로서 사용되었다. 도 11a, 11b, 11c 및 11d는 각각 CD8 T 세포에 결합된 시험된 컨터체가 없음을 도시한 것이다. 도 12a는 활성화된 또는 휴지 CD4+ T 세포에 대한 결합에 대한 곡선하 면적 값을 정리하여 도시한 것이고, 도 12b는 활성화된 또는 휴지 CD8+ T 세포에 대한 결합에 대한 곡선하 면적 값을 도시한 것이다.
도 13a, 13b, 13c 및 13d, 및 도 14a, 14b, 14c 및 14d는 각각 컨터체 1 내지 10의 인간 FAP 발현 종양 세포에 대한 결합을 도시한 것이다. 도 12a 내지 12d는 각각 NIH/3T3-huFAP 클론 19(FAP+) 종양 세포(FAP+ 양성)에 대한 결합을 도시한 것이다. 도 13a는 컨터체 1(P1AE1122), 컨터체 2(P1AE1942) 및 컨터체 3(P1AE1887)의 결합을 도시한 것이고, 도 13b는 컨터체 4(P1AE1888), 컨터체 5(P1AE2254) 및 컨터체 6(P1AE2340)의 결합을 도시한 것이다. 도 13c는 컨터체 7(P1AE0086) 및 컨터체 8(P1AE2735)의 결합을 도시한 것이고, 도 13d는 컨터체 9(P1AE2743) 및 컨터체 10(P1AE2762)의 결합을 도시한 것이다. 모든 OX40 x FAP 이중특이성 항체는 인간 FAP 발현 표적 세포에 효과적으로 결합하였다. 컨터체 8(도 12c)가 FAP+ 세포에 가장 강하게 결합하였고, 컨터체 10(도 12d) 및 컨터체 6(도 12b)가 이의 뒤를 이었고, 2+1 이중특이성 항체 OX40(49B4) x FAP(4B9)보다 훨씬 강하였다. 비표적화된 2+1 구조물 OX40(49B4) x DP47 및 음성 대조군(DP47 huIgG1 P329GLALA)은 FAP+ 세포에 결합하지 않았다. 도 14a 내지 14d는 컨터체 1 내지 10의 A549NLR(FAP- 음성)에 대한 상응하는 결합을 도시한 것이다. FAP- 표적 세포에 결합가능한 FAP 표적화된 분자(컨터체 1 내지 10 또는 2+1 이중특이성 항체 OX40(49B4) x FAP(4B9))는 없었다.
도 15a, 15b, 15c 및 15d는 가교결합에 의한 컨터체 1 내지 11의 NFκB 활성화를 도시한 것이다. FAP 발현 세포(NIH/3T3 huFAP 클론 19)를 가교결합제로서 사용하여, NFκB 활성화는 모든 컨터체와 비등하되, 컨터체 11(P1AE0821)이 최소의 효능이 있었다. 비표적화되고 이에 따라 가교결합되지 않은 2 비표적화된 2+1 OX40(49B4) x DP47 항체(7718)는 약한 NFκB 활성화를 유도하였고, 이중특이성 OX40(49B4) x FAP(4B9) 항체(7719)가 가장 높은 NFκB 활성화를 야기하였다. DP47 huIgG1 P329GLALA(8105)는 NFκB 활성화를 유도하지 않았다. 도 16a, 16b, 16c 및 16d는 가교결합에 의하지 않은 NFκB 활성화를 도시한 것이다. 가교결합의 부재에서, 약한 신호만이 보다 높은 항체 농도에서 검출될 수 있었다. 비표적화된 2+1 OX40(49B4) x DP47 항체(7718)는 중간 정도의 NFκB 활성화를 나타냈고, 컨터체 7가 이의 뒤를 이었다(도 16c). 다른 컨터체들은 음수 또는 0 수준을 유도하였다. 음성 대조군(8105)은 NFκB 활성화를 유도하지 않았다. 도 17은 FAP+ 세포와의 가교결합에 의한 또는 의하지 않은 HeLa 세포에서 정규화된 곡선하 면적을 정리하여 도시한 것이다. 음성 대조군(8105)은 둘다의 경우에서 임의의 NFκB 활성화를 유도하지 않았고, 비표적화된 2+1 OX40(49B4) x DP47 항체(7718)는 둘다의 경우에서 단지 최소의 활성화를 나타냈다. 이중특이성 항체 OX40(49B4) x FAP(4B9) 항체(7719)가 더 높은 수준의 활성화를 나타냈고, 컨터체 8, 9 및 10이 이의 뒤를 이었다. 컨터체 11(P1AE0821)에 대해 더 낮은 수준이 관찰되었다.
도 18a, 18b, 18c 및 18d는 컨터체 7, 8, 9 및 10의 부분최적화 TCR 유발된 휴지 인간 PBMC 및 세포 표면 FAP에 의한 초가교결합의 OX40 매개된 공동자극을 도시한 것이다. 부분최적화 CD3 자극 후 표면 마커 CD25를 사용하여, 도 18a 및 18b는 CD4 T 세포의 활성화를 도시한 것이고, 도 18c 및 18d는 CD8 T 세포의 활성화를 도시한 것이다. CD4 T 세포의 경우(도 18a 및 18b), 이중특이성 항체 OX40(49B4) x FAP(4B9) 항체(7719)가 가장 높은 활성을 나타내고, 최소로 적은 효능의 컨터체 8이 이의 뒤를 이었다. 비표적화된 2+1 OX40(49B4) x DP47 항체(7718) 및 음성 대조군(8105)은 기준선-보정 후 어떠한 활성화도 나타내지 않았다. CD8 T 세포의 경우(도 18c 및 18d), 컨터체 7, 8 및 9, 및 이중특이성 항체 OX40(49B4) x FAP(4B9) 항체(7719)는 컨터체 10보다 강한 활성을 나타냈다. 도 19a, 19b, 19c 및 19d는 각각 부분최적화 CD3 자극 후 FSC-A(CD4 T 세포의 크기(도 19a 및 19b) 및 CD8 T 세포의 크기(도 19c 및 19d))를 도시한 것이다. 모든 컨터체는 비등한 중간 정도의 증가를 나타냈다. 비표적화된 2+1 항-OX40 분자(7718) 및 음성 대조군(8105)의 추가는 CD4 또는 CD8 세포의 크기를 변화시키지 않았다. 도 20a, 20b, 20c 및 20d는 각각 이플루오르(eFlour) 670 수준, 즉 부분최적화 CD3 자극 후 CD4 T 세포(도 20a 및 20b) 및 CD8 T 세포(도 20C 및 20D)의 증식을 도시한 것이다. CD4 부분 집단에서, 컨터체 8 및 10은 이플루오르 60 수준의 상당한 감소를 나타냈고, 이는 강한 증식을 나타낸다. CD8 부분 집단에서, 컨터체 7 및 9는 이플루오르 670의 더 큰 감소를 나타냈다. 비표적화된 2+1 항-OX40 분자(7718) 및 음성 대조군(8105)은 모든 부분 집단에서 단지 약소한 감소만을 나타냈다. 도 21a, 21b, 21c 및 21d는 IL-7Rα(CD127) 하향조절에 대한 활성화를 도시한 것이다. 이중특이성 OX40(49B4) x FAP(4B9) 항체(7719)는 CD4 및 CD8 T 세포에 대해 가장 강한 하향조절을 나타냈고, 컨터체 10이 이의 뒤를 이었다. CD8 세포 부분 집단보다 CD4 부분 집단에서 CD127의 더 큰 하향조절이 관찰되었다. 도 22a, 22b, 22c 및 22d는 CD4 및 CD8 T 세포에서 CD25(도 22a), FSC-A(도 22b), 이플루오르 670(도 22c) 및 CD127(도 22d)에 대한 정규화된 곡선하 면적 값을 도시한 것이다. 비표적화된 2+1 항-OX40 분자(7718)는 CD4 및 CD8 T 세포에서 단지 최소의 활성화만을 나타냈고, 이중특이성 OX40(49B4) x FAP(4B9) 항체(7719)는 CD4 및 CD8 T 세포에서 이플루오르 670에 대해 컨터체보다 높은 효능을 나타냈다. CD25 및 FSC-A는 CD4 및 CD8 부분 집단 둘다에서 7719 분자 및 컨터체에 대해 유사한 활성화 수준을 나타냈다.
도 23a 및 23b는 4-1BB 발현 수용체 세포계 Jurkat-hu4-1BB-NFκB-luc2에서 NFκB 매개된 루시페라제 발현 활성을 도시한 것이다. 2+1 항-4-1BB(20H4.9) x 항-FAP(4B9) 컨터체 대 2+1 항-4-1BB(20H4.9) x 항-FAP(4B9) 항원 결합 분자 대 대조군의 기능을 시험하기 위해 분자를 항온배양하였다. 항원 결합 분자 또는 이의 대조군의 농도를 6시간의 항온배양 후 측정된 방출광 단위(RLU)에 대해 블로팅(blotting)하였다. 모든 값에서 미처리 대조군(예컨대 항체가 미첨가)의 기준선 값을 제함으로써 기준선 보정하였다. 도 23a는 FAP-표적-의존성 4-1BB 활성화를 도시한 것이고, 이에 의해 4-1BB-결합이 임의의 FAP-매개된 가교결합 없이 리포터 세포(reporter cell)에서 NFκB-제어된 루시페라제 발현을 유도한다. 도 23b는 FAP-고발현 세포계 NIH/3T3-huFAP 클론 19(인간-FAP-형질전환 마우스 섬유아세포 세포계)를 첨가한 것을 도시한 것이다. FAP-발현 종양 세포는 이중특이성 4-1BB(20H4.9) x FAP(4B9) 항원 결합 분자의 가교결합 및 이의 효능의 강한 증가를 야기하여 4-1BB-발현 리포터 세포계에서 NFκB-유도/루시페라제 활성화를 유도한다. 이중특이성 2+1 항-4-1BB(20H4.9) x 항-FAP(4B9) 항원 결합 분자(흑색 채색된 별 및 선)은 컨터체보다 약간 더 우수한 활성화(더 낮은 EC50 값)를 나타냈다. 그러나, 컨터체에 의해 야기되는 활성화는 비표적화된 4-1BB 항체에 의해 나타난 활성화보다 훨씬 높았다.
도 24a, 24b, 24c, 24d, 24e, 24f, 24g 및 24h는 2일의 항온배양 후 FAP-코팅되거나(도 24a, 24c, 24e 및 24g) 비코팅된(도 24b, 24d, 24f 및 24h) 다이나비드(Dynabeads: 등록상표)의 존재하에 2가 인간 항-CD40 x FAP 컨터체에 의한 인간 B 세포의 시험관내 활성화를 도시한 것이다. 가교결합된 SGN40에 의해 유도되는 CD69, CD80, CD86 및 HLA-DR의 FAP-비의존성 상향조절에 비해, FAP-의존성 이중특이성 항체 항원 결합 분자에 의해 유도된 상기 활성화 마커의 상향조절이 FAP-코팅된 비드의 존재하에 약간 더 낮았다. FAP(비코팅된 비드)의 부재에서, FAP-표적화된 항-CD40에 의해 CD69, CD80, CD86 또는 HLA-DR 발현의 증가가 관찰될 수 없었고, 가교결합된 양성 대조군 항체 SGN40은 상기 활성화 마커의 상향조절을 유도하였다. 제시된 적정된 컨터체 또는 대조군 항체에 의한 2일의 항온배양 후 CD69, CD80, CD86 또는 HLA-DR 양성 생존 B 세포의 %를 나타냈다. XL은 염소 항-인간 IgG Fcγ 단편인 F(ab')2 특이성을 갖는 가교결합을 나타낸다. x 축은 컨터체 구조물 또는 대조군 항체의 농도를 나타낸다.
정의
달리 정의하지 않는 한, 본원에 사용된 기술적 및 과학적 용어는 본 발명이 속한 분야에 일반적으로 사용되는 것과 동일한 의미를 갖는다. 본원의 이해를 위해, 하기 정의가 적용될 것이고, 단수형으로 사용되는 용어는 복수형을 포함하며, 이의 역도 마찬가지이다.
본원에 사용된 용어 "항원 결합 분자"는 넓게는, 항원 결정인자에 특이적으로 결합하는 분자를 지칭한다. 항원 결합 분자의 예는 항체, 항체 단편 및 스캐폴드(scaffold) 항원 결합 단백질이다.
용어 "항원 결합 도메인"은 항원 결정인자에 특이적으로 결합하는 항원 결합 분자를 지칭한다. 하나의 양상에서, 항원 결합 도메인은 이의 표적 세포 항원을 통해 신호전달을 활성화시킬 수 있다. 항원 결합 도메인은 항원의 부분 또는 전부에 부분적으로 결합하고 이에 상보적인 항체의 영역 또는 단편을 포함한다. 또한, 항원 결합 도메인은 본원에서 이후로 정의되는 스캐폴드 항원 결합 단백질, 예컨대 설계된 반복 단백질 또는 설계된 반복 도메인을 기반으로 하는 결합 도메인(예컨대 WO 2002/020565 참고)을 포함한다. 특히, 항원 결합 도메인은 제1 부분 및 제2 부분으로 구성되고, 여기서 제1 부분은 항체 경쇄 가변부(VL)를 포함하고, 제2 부분은 항체 중쇄 가변부(VH)를 포함하거나, 제2 부분이 항체 경쇄 가변부(VL)를 포함하고, 제1 부분은 항체 중쇄 가변부(VH)를 포함한다.
용어 "항체"는 본원에서 넓은 의미로 사용되고, 다양한 항체 구조, 예컨대 비한정적으로 단클론 항체, 다클론 항체, 단일특이성 항체 및 다중특이성 항체(예컨대 이중특이성 항체), 및 목적 항원-결합 활성을 나타내는 한의 항체 단편을 포함한다.
본원에 사용된 용어 "단클론 항체"는 실질적으로 균질한 항체의 집단으로부터 수득된 항체를 지칭하는데, 즉 상기 집단을 구성하는 개별 항체는, 예컨대 자연 발생 돌연변이를 함유하거나 단클론 항체의 제조 동안 발생하는 가능한 변이체 항체(이러한 항체는 일반적으로 소량으로 존재함)를 제외하고는 일치하고/거나 동일한 에피토프에 결합한다. 전형적으로, 상이한 결정인자(에피토프)에 대해 지향되는 다클론 항체 제제와는 대조적으로, 단클론 항체 제제의 단클론 항체는 항원의 단일 결정인자에 대해 지향된다.
본원에 사용된 용어 "단일특이성"은 각각이 동일한 항체의 동일한 에피토프에 결합하는 하나 이상의 결합 부위를 갖는 항체를 지칭한다. 용어 "이중특이성"은 항원 결합 분자가 2개 이상의 구별된 항원 결정인자에 특이적으로 결합가능함을 의미한다. 이중특이성 항원 결합 분자는 각각이 상이한 항원 결정인자에 특이적인 2개 이상의 항원 결정 부위를 포함한다. 특정 양태에서, 이중특이성 항원 결합 분자는 2개의 항원 결정인자, 특히 2개의 구별된 세포에 발현된 2개의 항원 결정인자에 동시에 결합할 수 있다. 예컨대, 본원의 항원 결합 분자는 제1 표적에 특이적으로 결합가능한 항원 결합 도메인 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인을 포함하는 이중특이성이다. 하나의 특정 양상에서, 본 발명의 항체는 OX40에 특이적으로 결합가능한 항원 결합 도메인 및 FAP에 특이적으로 결합가능한 항원 결합 도메인을 포함한다. 또 다른 특정 양상에서, 본 발명의 항체는 4-1BB에 특이적으로 결합가능한 항원 결합 도메인 및 FAP에 특이적으로 결합가능한 항원 결합 도메인을 포함한다. 하나의 추가의 양상에서, 본 발명의 항체는 CD40에 특이적으로 결합가능한 항원 결합 도메인 및 FAP에 특이적으로 결합가능한 항원 결합 도메인을 포함한다.
본원에 사용된 용어 "가(valent)"는 항원 결합 분자의 특정된 수의 결합 부위의 존재를 지칭한다. 따라서, 용어 "2가", "4가" 및 "6가" 각각은 항원 결합 분자의 2개, 4개 및 6개의 결합 부위를 지칭한다. 항원 결합 분자의 가는 소정 항원 결정인자에 대한 결합 부위의 수에 관하여 표현될 수도 있다. 예컨대, 본 발명의 이중특이성 항체는 제1 표적에 대해 2가이고, 제2 표적에 대해 1가이다.
용어 "전장 항체", "완전 항체" 및 "전 항체"는 고유 항체 구조와 실질적으로 유사한 구조를 갖는 항체를 지칭하는데 상호교환가능하게 사용된다. "고유 항체"는 다양한 구조로 자연 발생하는 면역글로불린 분자를 지칭한다. 예컨대, 고유 IgG-강(class) 항체는 다이설파이드로 결합된 2개의 경쇄 및 2개의 중쇄로 구성된 약 150,000 Da의 이종사량체 당단백질이다. N-말단에서 C-말단으로, 각각의 중쇄는 가변부(VH)(가변 중 도메인 또는 중쇄 가변 도메인으로도 지칭됨)에 이어 3개의 불변 도메인(CH1, CH2 및 CH3)(중쇄 가변부로도 지칭됨)을 갖는다. 유사하게, N-말단으로부터 C-말단으로, 각각의 경쇄는 가변부(VL)(가변 경 도메인 또는 경쇄 가변 도메인으로도 지칭됨)에 이어 경쇄 불변 도메인(CL)(경쇄 불변부로도 지칭됨)을 갖는다. 항체의 중쇄는 α(IgA), δ(IgD), ε(IgE), γ(IgG), 또는 μ(IgM)로 지칭되는 5개 유형으로 분류될 수 있고, 이 중 일부는 하위 유형, 예컨대 γ1(IgG1), γ2(IgG2), γ3(IgG3), γ4(IgG4), α1(IgA1) 및 α2(IgA2)로 추가로 나뉠 수 있다. 항체의 경쇄는 이의 불변 도메인의 아미노산 서열을 기준으로 카파(κ) 및 람다(λ)로 지칭되는 2개의 유형으로 분류될 수 있다.
"항체 단편"은 완전 항체 이외의 분자를 지칭하되, 이는 온전 항체가 결합하는 항원에 결합하는 온전 항체의 부분을 포함한다. 항체 단편의 예는 비한정적으로 Fv, Fab, Fab', Fab'-SH, F(ab')2, 이항체(diabody), 삼항체(tirabody), 사항체(tetrabody), 교차 Fab 단편, 선형 항체, 단일쇄 항체 분자(예컨대 scFv) 및 단일 도메인 항체를 포함한다. 특정 항체 단편의 개관을 위해, 문헌[Hudson et al., Nat Med 9, 129-134 (2003)]을 참고한다. scFv 단편의 개관을 위해, 예컨대 문헌[Pluckthun, in The Pharmacology of Monoclonal Antibodies, vol. 113, Rosenburg and Moore eds., Springer-Verlag, New York, pp. 269-315 (1994)]; WO 93/16185; US 5,571,894 및 US 5,587,458을 참고한다. 회수 수용체 결합 에피토프 잔기를 포함하고 증가된 체내 반감기를 갖는 Fab 및 F(ab')2의 논의를 위해 US 5,869,046을 참고한다. 이항체는 2가 또는 이중특이성일 수 있는 2개의 항원 결합 부위를 갖는 항체 단편이고, 예컨대 EP 404,097; WO 1993/01161; 문헌[Hudson et al., Nat Med 9, 129-134 (2003)]; 및 문헌[Hollinger et al., Proc Natl Acad Sci USA 90, 6444-6448 (1993)]을 참고한다. 삼항체도 문헌[Hudson et al., Nat Med 9, 129-134 (2003)]에 기재되어 있다. 단일 도메인 항체는 항체의 중쇄 가변 도메인의 전부 또는 부분; 또는 항체의 경쇄 가변 도메인의 전부 또는 부분을 포함하는 항체 단편이다. 특정 양태에서, 단일-도메인 항체는 인간 단일 도메인 항체이다(미국 메사추세츠주 월탐 소재의 도만티스 인코포레이티드(Domantis, Inc.), 예컨대 US 6,248,516 B1 참고). 항체 단편은 본원에 기재된 바와 같이 다양한 기법, 예컨대 비한정적으로 완전 항체의 단백질분해성 소화 및 재조합 숙주 세포(예컨대 E.coli 또는 파지)에 의한 제조에 의해 제조될 수 있다.
완전 항체의 파파인 소화는 2개의 일치하는 항원 결합 단편을 생성하고, 이는 각각 중쇄 및 경쇄 가변 도메인 및 불변 도메인, 및 중쇄의 제1 불변 도메인(CH1)을 함유하는 Fab 단편으로도 지칭된다. 따라서, 본원에 사용된 용어 "Fab 단편"은 경쇄의 VL 및 불변 도메인(CL)을 포함하는 경쇄 단편, 및 중쇄의 VH 및 제1 불변 도메인을 포함하는 항체를 지칭한다. Fab' 단편은 항체 경첩부의 하나 이상의 시스테인을 비롯하여 중쇄 CH1 도메인의 카복시 말단의 몇몇 잔기가 추가됨으로써 Fab 단편과는 상이하다. Fab'-SH는 불면 도메인의 시스테인 잔기가 유리 티올 기를 보유하는 Fab' 단편이다. 펩신 처리는 2개의 항원-조합 부위(2개의 Fab 단편) 및 Fc 영역의 부분을 갖는 F(ab')2 단편을 생성한다. 본 발명에 따라, 용어 "Fab 단편"은 하기 정의된 "교차 Fab 단편" 또는 "교차(crossover) Fab 단편"도 포함한다.
용어 "교차 Fab 단편", "xFab 단편" 또는 "교차-Fab 단편"은 중쇄의 가변부 또는 불변부가 교환된 Fab 단편을 지칭한다. 2개의 상이한 쇄 조성의 교차 Fab 분자가 가능하고 본 발명의 이중특이성 항체에 포함된다. 한편, Fab 중쇄 및 경쇄의 가변부가 교환되는데, 즉 교차 Fab 분자는 경쇄 가변부(VL) 및 중쇄 불변부(CH1)로 구성된 펩티드 쇄, 및 중쇄 가변부(VH) 및 경쇄 불변부(CL)로 구성된 펩티드 쇄를 포함한다. 이러한 교차 Fab 분자는 교차 Fab(VLVH)로도 지칭된다. 한편, Fab 중쇄 및 경쇄의 불변부가 교환될 ??, 교차 Fab 분자는 중쇄 가변부(VH) 및 경쇄 불변부(CL)로 구성된 펩티드 쇄, 및 경쇄 가변부(VL) 및 중쇄 불변부(CH1)로 구성된 펩티드 쇄를 포함한다. 이러한 교차 Fab는 교차 Fab(CLCH1)로도 지칭된다.
"단일쇄 Fab 단편" 또는 "scFab"는 항체 중쇄 가변 도메인(VH), 항체 불변 도메인 1(CH1), 항체 경쇄 가변 도메인(VL), 항체 경쇄 불변 도메인(CL) 및 연결자로 이루어진 폴리펩티드로서, 상기 항체 도메인들 및 연결자는 N-말단에서 C-말단 방향으로 a) VH-CH1-연결자-VL-CL, b) VL-CL-연결자-VH-CH1, c) VH-CL-연결자-VL-CH1 또는 d) VL-CH1-연결자-VH-CL의 순서 중 하나를 갖고, 상기 연결자는 30개 이상, 바람직하게는 32 내지 50개의 아미노산의 폴리펩티드이다. 상기 단일쇄 Fab 단편은 CL 도메인과 CH1 도메인간의 자연적인 다이설파이드 결합을 통해 안정화된다. 또한, 이러한 단일쇄 Fb 분자는 시스테인 잔기의 삽입(예컨대, 카밧 번호부여에 따라 중쇄에서 위치 44 및 가변 경쇄에서 위치 100)을 통해 쇄간 다이설파이드 결합의 생성에 의해 더욱 안정화될 수 있다.
"교차 단일쇄 Fab 단편" 또는 "x-scFab"는 항체 중쇄 가변 도메인(VH), 항체 불변 도메인 1(CH1), 항체 경쇄 가변 도메인(VL), 항체 경쇄 불변 도메인(CL) 및 연결자로 이루어진 폴리펩티드로서, 상기 항체 도메인들 및 연결자는 N-말단에서 C-말단 방향으로 a) VH-CL-연결자-VL-CH1 또는 b) VL-CH1-연결자-VH-CL의 순서 중 하나를 갖고, VH 및 VL은 함께 항원에 특이적으로 결합하는 항원 결합 도메인을 형성하고 상기 연결자는 30개 이상의 아미노산의 폴리펩티드이다. 또한, 이러한 x-Fab 분자는 시스테인 잔기의 삽입(예컨대, 카밧 번호부여에 따라 가변 중쇄에서 위치 44 및 가변 경쇄에서 위치 100)을 통해 쇄간 다이설파이드 결합의 생성에 의해 더욱 안정화될 수 있다.
"단일쇄 가변 단편(scFv)"은 10 내지 약 25개의 아미노산의 짧은 연결자 펩티드로 연결된 항체의 중쇄(VH) 및 경쇄(VL)의 가변부의 융합 단백질이다. 통상적으로, 연결자는 글리신이 풍부하여 가요성이 있고, 세린 또는 트레오닌이 풍부하여 용해성이 있으며, VH의 N-말단과 VL의 C-말단을 연결하거나 VH의 C-말단과 VL의 N-말단을 연결할 수 있다. 이러한 단백질은 불변부의 제거 및 연결자의 도입에도 불구하고 고유의 항체의 특이성을 유지한다. scFV 항체는, 예컨대 문헌[J.S., Methods in Enzymol. 203 (1991) 46-96)]에 기재되어 있다. 또한, 항체 단편은 VL과 함께 기능 항원 결합 부위로 조립되는 VH 또는 VH와 함께 기능 항원 결합 부위로 조립되는 VL의 특성을 갖는 단일쇄 폴리펩티드를 포함하고, 이에 따라 전장 항체의 항원 결합 특성을 제공한다.
"스캐폴드 항원 결합 단백질"은 당업계에, 예컨대 피브로넥틴으로 공지되어 있고, 설계된 안키린 반복 단백질(DARPin)이 항원 결합 도메인을 위한 대체 스캐폴드로서 사용되어져 왔다(예컨대 문헌[Gebauer and Skerra, Engineered protein scaffolds as next-generation antibody therapeutics. Curr Opin Chem Biol 13:245-255 (2009)] 및 문헌[Stumpp et al., Darpins: A new generation of protein therapeutics. Drug Discovery Today 13: 695-701 (2008)] 참고). 본 발명의 하나의 양상에서, 스캐폴드 항원 결합 단백질은 CTLA-4(에비바디(Evibody)), 리포칼린(안티칼린(Anticalin)), 단백질 A 유도된 분자, 예컨대 단백질 A의 Z-도메인(어피바디(Affibody)), A-도메인(어비머(Avimer)/맥시바디(Maxibody)), 형철 트랜스페린(트랜스-바디(trans-body)); 설계된 알키린 반복 단위(DARPin), 항체 경쇄 또는 중쇄의 가변 도메인(단일 도메인 항체, sdAb), 항체 중쇄의 가변 도메인(나노바디(nanobody), aVH), VNAR 단편, 피브로넥틴(아드넥틴(AdNectin)), C-형 렉틴 도메인(테트라넥틴(Tetranectin)); 신규 항원 수용체 베타-락타마제의 가변 도메인(VNAR 단편), 인간 감마-크리스탈린 또는 유비퀴틴(어필린 분자(Affilin molecule)); 인간 단백질분해효소 억제제의 쿠니츠(kunitz) 유형 도메인, 마이크로바디, 예컨대 놋틴(knottin) 과의 단백질, 펩티드 압타머 및 피브로넥틴(아드넥틴)으로 이루어진 군으로부터 선택된다. CTLA-4(세포톡성 T 림프구-관련 항원 4)는 주로 CD4+ T 세포에 발현되는 CD28-과의 수용체이다. 이의 세포외 도메인은 가변 도메인-유사 Ig 접힘(fold)을 갖는다. 항체의 CDR에 상응하는 루프(loop)는 상이한 결합 특성을 부여하는 이종 서열로 치환될 수 있다. 상이한 결합 특이성을 갖도록 변형된 CTLA-4 분자는 에비바디로도 공지되어 있다(예컨대 US 7166697 B1). 에비바디는 항체(예컨대 도메인 항체)의 단리된 가변부와 대략 동일한 크기이다. 더욱 자세한 설명은 문헌[Journal of Immunological Methods 248 (1-2), 31-45 (2001)]을 참고한다. 리포칼린은 작은 소수성 분자, 예컨대 스테로이드, 빌린, 레티노이드 및 지질을 운반하는 세포외 단백질 과이다. 이는 원뿔형 구조의 열린 말단에 다수의 루프를 갖는 단단한 베타-시트 2차 구조를 갖고, 상이한 표적 항원에 결합하도록 변형될 수 있다. 안티칼린은 160 내지 180 아미노산 크기이고, 리포칼린으로부터 유도된다. 더욱 자세한 설명은 문헌[Biochim Biophys Acta 1482: 337-350 (2000)], US 7250297B1 및 US 20070224633을 참고한다. 어피바디는 스타필로코커스 아우레우스의 단백질 A로부터 유도된 스캐폴드이고, 항원에 결합하도록 변형될 수 있다. 상기 도메인은 약 58개의 아미노산의 3개의 나선형 다발로 이루어진다. 라이브러리는 표면 잔기의 무작위화에 의해 생성된다. 더욱 자세한 설명은 문헌[Protein Eng. Des. Sel. 2004, 17, 455-462] 및 EP 1641818A1을 참고한다. 아비머는 A-도메인 스캐폴드 과로부터 유도된 다도메인 단백질이다. 약 35 아미노산의 고유 도메인은 한정된 다이설파이드 결합 구조를 채용한다. 다양성은 A-도메인 과에 의해 나타나는 자연 변이를 셔플링(shuffling)함으로써 생성된다. 더욱 자세한 설명은 문헌[Nature Biotechnology 23(12), 1556 - 1561 (2005)] 및 문헌[Expert Opinion on Investigational Drugs 16(6), 909-917 (June 2007)]을 참고한다. 트랜스페린은 허용되는 표면 루프 내의 펩티드 서열의 삽입에 의해 상이한 표적 항원에 결합하도록 변형될 수 있다. 변형된 트랜스페린 스캐폴드의 예는 트랜스-바디를 포함한다. 더욱 자세한 설명은 문헌[J. Biol. Chem 274, 24066-24073 (1999)]를 참고한다. 설계된 안키린 반복 단위 단백질(DARPin)은 세포골격에 대한 내재막 단백질의 부착을 매개하는 단백질 과인 안키린으로부터 유도된다. 단일 안키린 반복은 2개의 알파 나선 및 하나의 베타 턴(turn)으로 이루어진 33개의 잔기 모티프이다. 이는 각각의 반복의 제1 알파 나선 및 베타 턴 내의 잔기를 무작위화함으로써 상이한 표적 항원에 결합하도록 변형될 수 있다. 이의 결합 계면은 모듈의 수를 증가시킴(친화도 성숙의 방법)으로써 증가될 수 있다. 더욱 자세한 설명은 문헌[J. Mol. Biol. 332, 489-503 (2003), PNAS 100(4), 1700-1705 (2003)]; 문헌[J. Mol. Biol. 369, 1015-1028 (2007)] 및 US 20040132028 A1을 참고한다. 단일 도메인 항체는 단일 단량체 가변 항체 도메인으로 이루어진 항체 단편이다. 최초의 단일 도메인은 낙타로부의 항체 중쇄의 가변 도메인으로부터 유도되었다(나노바디 또는 VHH 단편). 또한, 용어 "단일 도메인 항체"는 자율 인간 중쇄 가변 도메인(VH) 또는 상어로부터 유도된 VNAR 단편을 포함한다. 피브로넥틴은 항원에 결합하도록 변형될 수 있는 스캐폴드이다. 아드넥틴은 인간 피브로넥틴 III형(FN3)의 15개 반복 단위의 10번째 도메인의 자연 아미노산 서열의 골격으로 이루어진다. 베타 샌드위치의 하나의 말단에서 3개의 루프는 아드넥틴이 관심 치료 표적을 특이적으로 인식하도록 변형될 수 있다. 더욱 자세한 설명은 문헌[Des. Sel. 18, 435- 444 (2005)], US 20080139791, WO 2005056764 및 US 6818418 B1을 참고한다. 펩티드 압타머는 스캐폴드 단백질, 전형적으로는, 활성 부위에 삽입된 구속된 가변 펩티드 루프를 함유하는 티오레독신(TrxA)으로 이루어지는 조합화학 인식 분자이다. 더욱 자세한 설명은 문헌[Expert Opin. Biol. Ther. 5, 783-797 (2005)]을 참고한다. 마이크로바디는 3 내지 4개의 시스테인 가교를 함유하는 25 내지 50 아미노산 길의의 자연 발생 마이크로단백질로부터 유도되고, 마이크로단백질의 예는 칼라타바이(KalataBI), 코노톡신 및 놋틴을 포함한다. 마이크로단백질은 마이크로단백질의 전반적인 접힘에 영향을 줌 없이 25개 이하의 아미노산을 포함하도록 변형될 수 있다. 변형된 놋틴 도메인의 더 자세한 설명은 WO 2008098796을 참고한다.
참조 분자로서 "동일한 에피토프에 결합하는 항원 결합 분자"는 경쟁 분석에서 이의 항원에 대한 상기 참조 분자의 결합을 50% 이상 차단하는 항원 결합 분자를 지칭하고, 역으로, 상기 참조 분자는 경쟁 분석에서 상기 항원 결합 분자의 항원에 대한 결합을 50% 이상 차단한다.
본원에 사용된 용어 "항원 결정인자"는 "항원" 및 "에피토프"와 동의어이고, 항원 결합 잔기가 결합하여 항원 결합 잔기-항원 복합체를 형성하는 폴리펩티드의 부위(예컨대 아미노산의 연속적인 이어짐 또는 불연속적인 아미노산의 상이한 영역으로 이루어진 일치 형태)를 지칭한다. 유용한 항원 결정인자는, 예컨대 종양 세포의 표면, 바이러스-감염 세포의 표면, 기타 질환 세포의 표면, 면역 세포의 표면, 혈청의 유리물(free) 및/또는 세포외 기질(ECM)에서 찾을 수 있다. 달리 제시하지 않는 한, 본원에서 항원으로서 유용한 단백질은 임의의 척추동물 출처, 예컨대 영장류(예컨대 인간) 및 설치류(예컨대 마우스 및 래트)로부터의 임의의 고유한 형태의 단백질일 수 있다. 특정한 양태에서, 항원은 인간 단백질이다. 본원에서 특정 단백질을 참조하는 경우, 용어 "전장"은 미처리 단백질, 및 세포내 처리로부터 야기되는 임의의 형태의 단백질을 포괄한다. 또한, 상기 용어는 단백질의 자연 발생 변이체, 예컨대 스플라이스 변이체 또는 대립유전자 변이체를 포괄한다.
용어 "파라토프(paratope)"는 표적과 결합 부위간 특이적 결합에 요구되는 소정 항체 분자의 일부를 지칭한다. 파라토프는 연속적일 수 있거나(즉 결합 부위에 존재하는 인접 아미노산 잔기에 의해 형성됨), 불연속적일 수 있다(즉 아미노산 잔기의 1차 서열, 예컨대 아미노산 잔기의 CDR의 아미노산 서열에서 상이한 위치에 있는 아미노산 잔기에 의해 형성되되, 결합 부위가 채용하는 3차원 구조에 근접하게 형성됨).
"특이적 결합"은 결합이 항원에 대해 선택성이고 원치않거나 비특이적인 상호작용과는 구별될 수 있음을 의미한다. 항원 결합 분자가 특정 항원에 결합하는 능력은 효소결합 면역흡착 분석(ELISA) 또는 당업자에게 친숙한 기타 기법, 예컨대 표면 플라즈몬 공명(SPR) 기법(비아코어(BIAcore) 계시에서 분석됨)(문헌[Liljeblad et al., Glyco J 17, 323-329 (2000)]), 및 종래의 결합 분석(문헌[Heeley, Endocr Res 28, 217-229 (2002)])을 통해 측정될 수 있다. 하나의 양태에서, 비관련 단백질에 대한 항원 결합 분자의 결합도는, 예컨대 SPR에 의해 측정되어 항원에 대한 항원 결합 분자의 결합의 약 10% 미만이다. 특정 양태에서, 항원에 결합하는 분자는 1 μM 이하, 100 nM 이하, 10 nM 이하, 1 nM 이하, 0.1 nM 이하, 0.01 nM 이하 또는 0.001 nM 이하(예컨대 10-8 M 이하, 예를 들어 10-8 내지 10-13 M, 예를 들어 10-9 내지 10-13 M)의 해리 상수(Kd)를 갖는다.
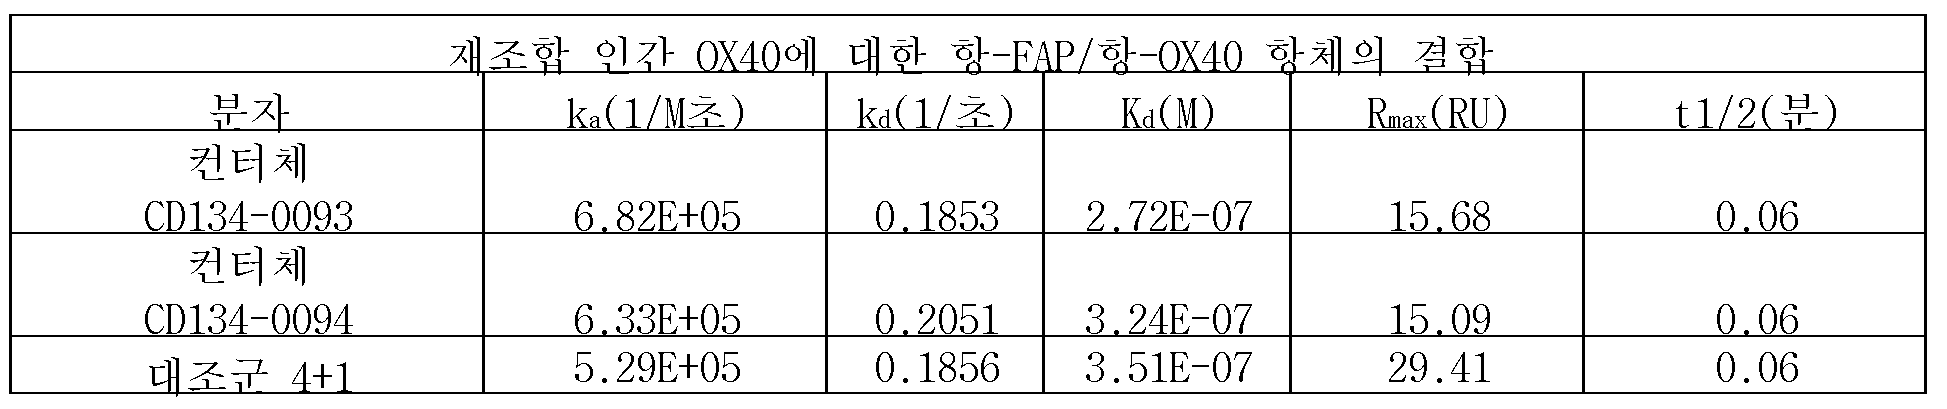
"친화도" 또는 "결합 친화도"는 분자(예컨대 항체)의 단일 결합 부위와 이의 결합짝(예컨대 항원)간 비공유결합 상호작용의 총 합의 세기를 지칭한다. 달리 제시하지 않는 한, 본원에 사용된 "결합 친화도"는 고유 결합 친화도를 지칭하고, 이는 결합짝 구성원들(항체와 항원)간의 1:1 상호작용을 반영한다. 분자 X 및 이의 결합짝 Y의 친화도는 일반적으로 해리 상수(Kd)에 의해 표시될 수 있고, 이는 해리 속도 상수(koff)와 회합 속도 상수(kon)의 비이다. 따라서, 등가의 친화도는 속도 상수의 비가 동일하게 유지되는 한 상이한 속도 상수를 포함할 수 있다. 친화도는 본원에 기재된 것을 비롯한 당업계 통상의 방법으로 측정될 수 있다. 친화도 측정을 위한 특정 방법은 SPR이다.
"친화도 성숙된"은 하나 이상의 초가변부(HVR)에 하나 이상의 변경을 갖는 항체(이러한 변경을 갖지 않는 모항체와 비교됨)를 지칭하고, 이러한 변경은 항원에 대한 항체의 친화도의 향상을 야기한다.
본원에 사용된 "종양 관련 항원"은 표적 세포(종양내에 있는 세포, 예컨대 암세포, 종양 기질의 세포 또는 B 세포)의 표면에 제시되는 항원 결정인자를 지칭한다. 특정 양상에서, 종양 관련 항원은 FAP이다.
용어 "FAP에 특이적으로 결합가능한"은 FAP에 충분한 친화도로 결합하여 FAP를 표적으로 하는 진단제 및/또는 치료제로서 유용한 항원 결합 분자를 지칭한다. 항원 결합 분자는 비한정적으로 항체, Fab 분자, 교차 Fab 분자, 단일쇄 Fab 분자, Fv 분자, scFv 분자, 단일 도메인 항체, 및 VH 및 항원 결합 단백질을 포함한다. 하나의 양상에서, 비관련 비FAP 단백질에 대한 항-FAP 항원 결합 분자의 결합도는, 예컨대 SPR에 의해 측정되어 FAP에 대한 상기 항원 결합 분자의 결합의 약 10% 미만이다. 특히, FAP에 특이적으로 결합가능한 항원 결합 분자는 1 μM 이하, 100 nM 이하, 10 nM 이하, 1 nM 이하, 0.1 nM 이하, 0.01 nM 이하 또는 0.001 nM 이하(예컨대 10-8 M 이하, 예를 들어 10-8 내지 10-13 M, 예를 들어 10-9 내지 10-13 M)의 해리 상수(Kd)를 갖는다. 특정한 양태에서, 항-FAP 항원 결합 분자는 상이한 종으로부터의 FAP에 결합한다. 특히, 항-FAP 항원 결합 분자는 인간, 시노몰거스(cynomolgus) 및 마우스 FAP에 결합한다.
프롤릴 엔도펩티다제 또는 세프라제(EC 3.4.21)로도 공지되어 있는 용어 "섬유아세포 활성화 단백질(FAP)"은 달리 제시하지 않는 한 임의의 척추 동물 출처, 예컨대 포유동물, 예컨대 영장류(예컨대 인간), 비인간 영장류(예컨대 시노몰거스 원숭이) 및 설치류(예컨대 마우스 및 래트)로부터의 임의의 고유 FAP를 지칭한다. 용어 "전장"은 미처리 단백질, 및 세포내 처리로부터 야기되는 임의의 형태의 단백질을 포괄한다. 또한, 상기 용어는 단백질의 자연 발생 변이체, 예컨대 스플라이스 변이체 또는 대립유전자 변이체를 포괄한다. 하나의 양태에서, 본 발명의 항원 결합 분자는 인간, 마우스 및/또는 시노몰거스 FAP에 특이적으로 결합가능하다. 인간 FAP의 아미노산 서열은 유니프로트(UniProt)(www.uniprot.org) 접근번호 Q12884(버전 149, 서열번호 97), 또는 NCBI(www.ncbi.nlm.nih.gov/) RefSeq NP_004451.2에 제시되어 있다. 인간 FAP의 세포외 도메인(ECD)은 아미노산 위치 26에서 760으로 이어진다. 마우스 FAP의 아미노산 서열은 유니프로트 접근번호 P97321(버전 126, 서열번호 98), 또는 NCBI RefSeq NP_032012.1에 제시되어 있다. 마우스 FAP의 세포외 도메인(ECD)은 아미노산 위치 26에서 761로 이어진다. 바람직하게는, 본 발명의 항-FAP 결합 분자는 FAP의 세포외 도메인에 결합한다. 예시적인 항-FAP 결합 분자는 WO 2012/020006 A2에 기재되어 있다.
용어 "가변부" 또는 "가변 도메인"은 항원에 대한 항원 결합 분자의 결합에 참여하는 항체 중쇄 또는 경쇄의 도메인을 지칭한다. 일반적으로, 고유 항체의 중쇄 및 경쇄의 가변 도메인(각각 VH 및 VL)은 4개의 보존 골격부(FR) 및 3개의 초가변부(HVR)를 포함하는 각각의 도메인을 갖는 유사한 구조를 갖는다. 예컨대, 문헌[Kindt et al., Kuby Immunology, 6th ed., W.H. Freeman and Co., page 91 (2007)]을 참고한다. 단일 VH 또는 VL은 항원 결합 특이성을 부여하기에 충분할 수 있다.
본원에 사용된 용어 "초가변부" 또는 "HVR"은 서열(상보성 결정부, 또는 CDR)이 초가변성이고/거나 구조적으로 한정된 루프(초가변 루프)를 형성하고/거나 하우언 접촉 잔기(항원 접촉부)를 함유하는 항원 가변 도메인의 각각의 영역을 지칭한다. 일반적으로, 항체는 6개의 HVR(VH에서 3개(H1, H2 및 H3), 및 VL에서 3개(L1, L2 및 L3))을 포함한다. 본원에서 예시적인 HVR은 하기를 포함한다:
(a) 아미노산 잔기 26-32(L1), 50-52(L2), 91-96(L3), 26-32(H1), 53-55(H2) 및 96-101(H3)에서 나타나는 초가변 루프(문헌[Chothia and Lesk, J. Mol . Biol. 196:901-917 (1987)]);
(b) 24-34(L1), 50-56(L2), 89-97(L3), 31-35b(H1), 50-65(H2), 및 95-102(H3)에서 나타나는 CDR(문헌[Kabat et al., Sequences of Proteins of Immunological Interest, 5th Ed. Public Health Service, National Institutes of Health, Bethesda, MD (1991)]);
(c) 아미노산 잔기 27c-36(L1), 46-55(L2), 89-96(L3), 30-35b(H1), 47-58(H2) 및 93-101(H3)에서 나타나는 항원 접촉부(MacCallum et al. J. Mol . Biol. 262: 732-745 (1996)); 및
(d) 상기 (a), (b) 및/또는 (c)의 조합, 및 HVR 아미노산 잔기 46-56(L2), 47-56(L2), 48-56(L2), 49-56(L2), 26-35(H1), 26-35b(H1), 49-65(H2), 93-102(H3) 및 94-102(H3).
달리 제시하지 않는 한, HVR(예컨대 CDR) 잔기, 및 가변 도메인의 기타 잔기(예컨대 FR 잔기)는 본원에서 상기 카밧 등에 따른 문헌에 따라 번호부여된다.
또한, 카밧 등은 임의의 항체에 적용가능한 가변부 서열을 위한 번호부여 체계를 정의하였다. 당업자는 "카밧 번호부여"의 서열 자체 이외의 임의의 실험 데이터에 의존하지 않고 상기 체계를 임의의 가변부 서열에 명확히 적용할 수 있다. 본원에 사용된 "카밧 번호부여"는 문헌[Kabat et al., U.S. Dept. of Health and Human Services, "Sequence of Proteins of Immunological Interest" (1983)]에 의해 제시된 번호부여 체게를 지칭한다. 달리 특정하지 않는 한, 항체 가변부의 특정 아미노산 잔기 위치의 번호부여에 대한 참조는 카밧 번호부여 체계를 따른다.
본원에 사용된 용어 "친화도 성숙된"은 항원 결합 분자(예컨대 항체)의 맥락에서, 예컨대 돌연변이에 의해, 참조 항체와 동일한 항원에 결합하고, 바람직하게는 동일한 에피토프에 결합하는 상기 참조 항체 결합 분자로부터 유도된 항원 결합 분자를 지칭하고, 항원에 대해 상기 참조 항원 결합 분자의 친화도보다 높은 친화도를 갖는다. 일반적으로, 친화도 성숙은 항원 결합 분자의 하나 이상의 CDR의 하나 이상의 아미노산의 변형을 수반한다. 전형적으로, 친화도 성숙된 항원 결합 분자는 초기 참조 항원 결합 분자와 동일한 에피토프에 결합한다.
"골격체" 또는 "FR"은 초가변부(HVR) 잔기 이외의 가변 도메인 잔기를 지칭한다. 일반적으로, 가변 도메인의 FR은 4개의 도메인(FR1, FR2, FR3 및 FR4)으로 이루어진다. 따라서, HVR 및 FR 서열은 일반적으로 VH(또는 VL): FR1-H1(L1)-FR2-H2(L2)-FR3-H3(L3)-FR4의 순서로 나타난다.
본원의 목적을 위해, "수용체 인간 골격체"는 하기 정의된 인간 면역글로불린 골격체 또는 인간 공통 골격체로부터 유도된 경쇄 가변 도메인(VL) 골격체 또는 중쇄 가변 도메인(VH) 골격체의 아미노산 서열을 포함하는 골격체를 포함한다. 인간 면역글로불린 골격체 또는 인간 공통 골격체로부터 유도된 골격체는 이와 동일한 아미노산 서열을 포함할 수 있거나, 아미노산 서열 변화를 함유할 수 있다. 일부 양태에서, 10개 이하, 9개 이하, 8개 이하, 7개 이하, 6개 이하, 5개 이하, 4개 이하, 3개 이하 또는 2개 이하의 아미노산 변화가 존재한다. 일부 양태에서, VL 수용체 인간 골격체는 VL 인간 면역글로불린 골격체 서열 또는 인간 공통 골격체 서열과 일치한다.
용어 "키메라 항체"는 중쇄 및/또는 경쇄의 일부가 특정 출처 또는 종으로부터 유도되고, 나머지 중쇄 및/또는 경쇄가 상이한 출처 또는 종으로부터 유도된 항체를 지칭한다.
항체의 "강(class)"은 중쇄에 의해 보유되는 불변 도메인 또는 불변부의 유형을 지칭한다. 항체의 5개 주요 강(IgA, IgD, IgE, IgG 및 IgM)이 존재하고, 이중 몇몇은 아강(동형)(예컨대 IgG1, IgG2, IgG3, IgG4, IgA1 및 IgA2)으로 더욱 나뉠 수 있다. 상이한 강의 면역글로불린에 상응하는 중쇄 불변 도메인은 각각 α, δ, ε, γ 및 μ로 지칭된다.
"인간화된 항체"는 비인간 HVR로부터의 아미노산 잔기 및 인간 FR로부터의 아미노산 잔기를 포함하는 키메라 항체를 지칭한다. 특정 양태에서, 인간화된 항체는 하나 이상, 전형적으로는 2개 이상의 가변 도메인을 실질적으로 모두 포함할 것이고, 여기서 HVR(예컨대 CDR)의 모두 또는 실질적으로 모두는 비인간 항체의 것에 상응하고, FR의 모두 또는 실질적으로 모두는 인간 항체의 것에 상응한다.
인간화된 항체는 인간 항체로부터 유도된 항체 불변부의 적어도 일부를 임의적으로 포함할 수 있다. "항체의 인간화된 형태", 예컨대 비인간 항체는 인간화를 거친 항체를 지칭한다. 본 발명에 포괄되는 다른 형태의 "인간화된 항체"는 불변부가 원래 항체의 불변부로부터 추가적으로 변형되거나 변화되어 본 발명에 따른 특성, 특히 C1q 결합 및/또는 Fc 수용체(FcR) 결합을 생성하는 항체이다.
"인간 항체"는 인간 또는 인간 세포에 의해 생산되거나, 인간 항체 레퍼토리 또는 인간 항체 암호화 서열을 이용하는 비인간 출처로부터 유도된 항체의 아미노산 서열에 상응하는 아미노산 서열을 보유하는 항체이다. 구체적으로는, 이러한 인간 항체의 정의는 비인간 항원 결합 잔기를 포함하는 인간화된 항체는 배제한다.
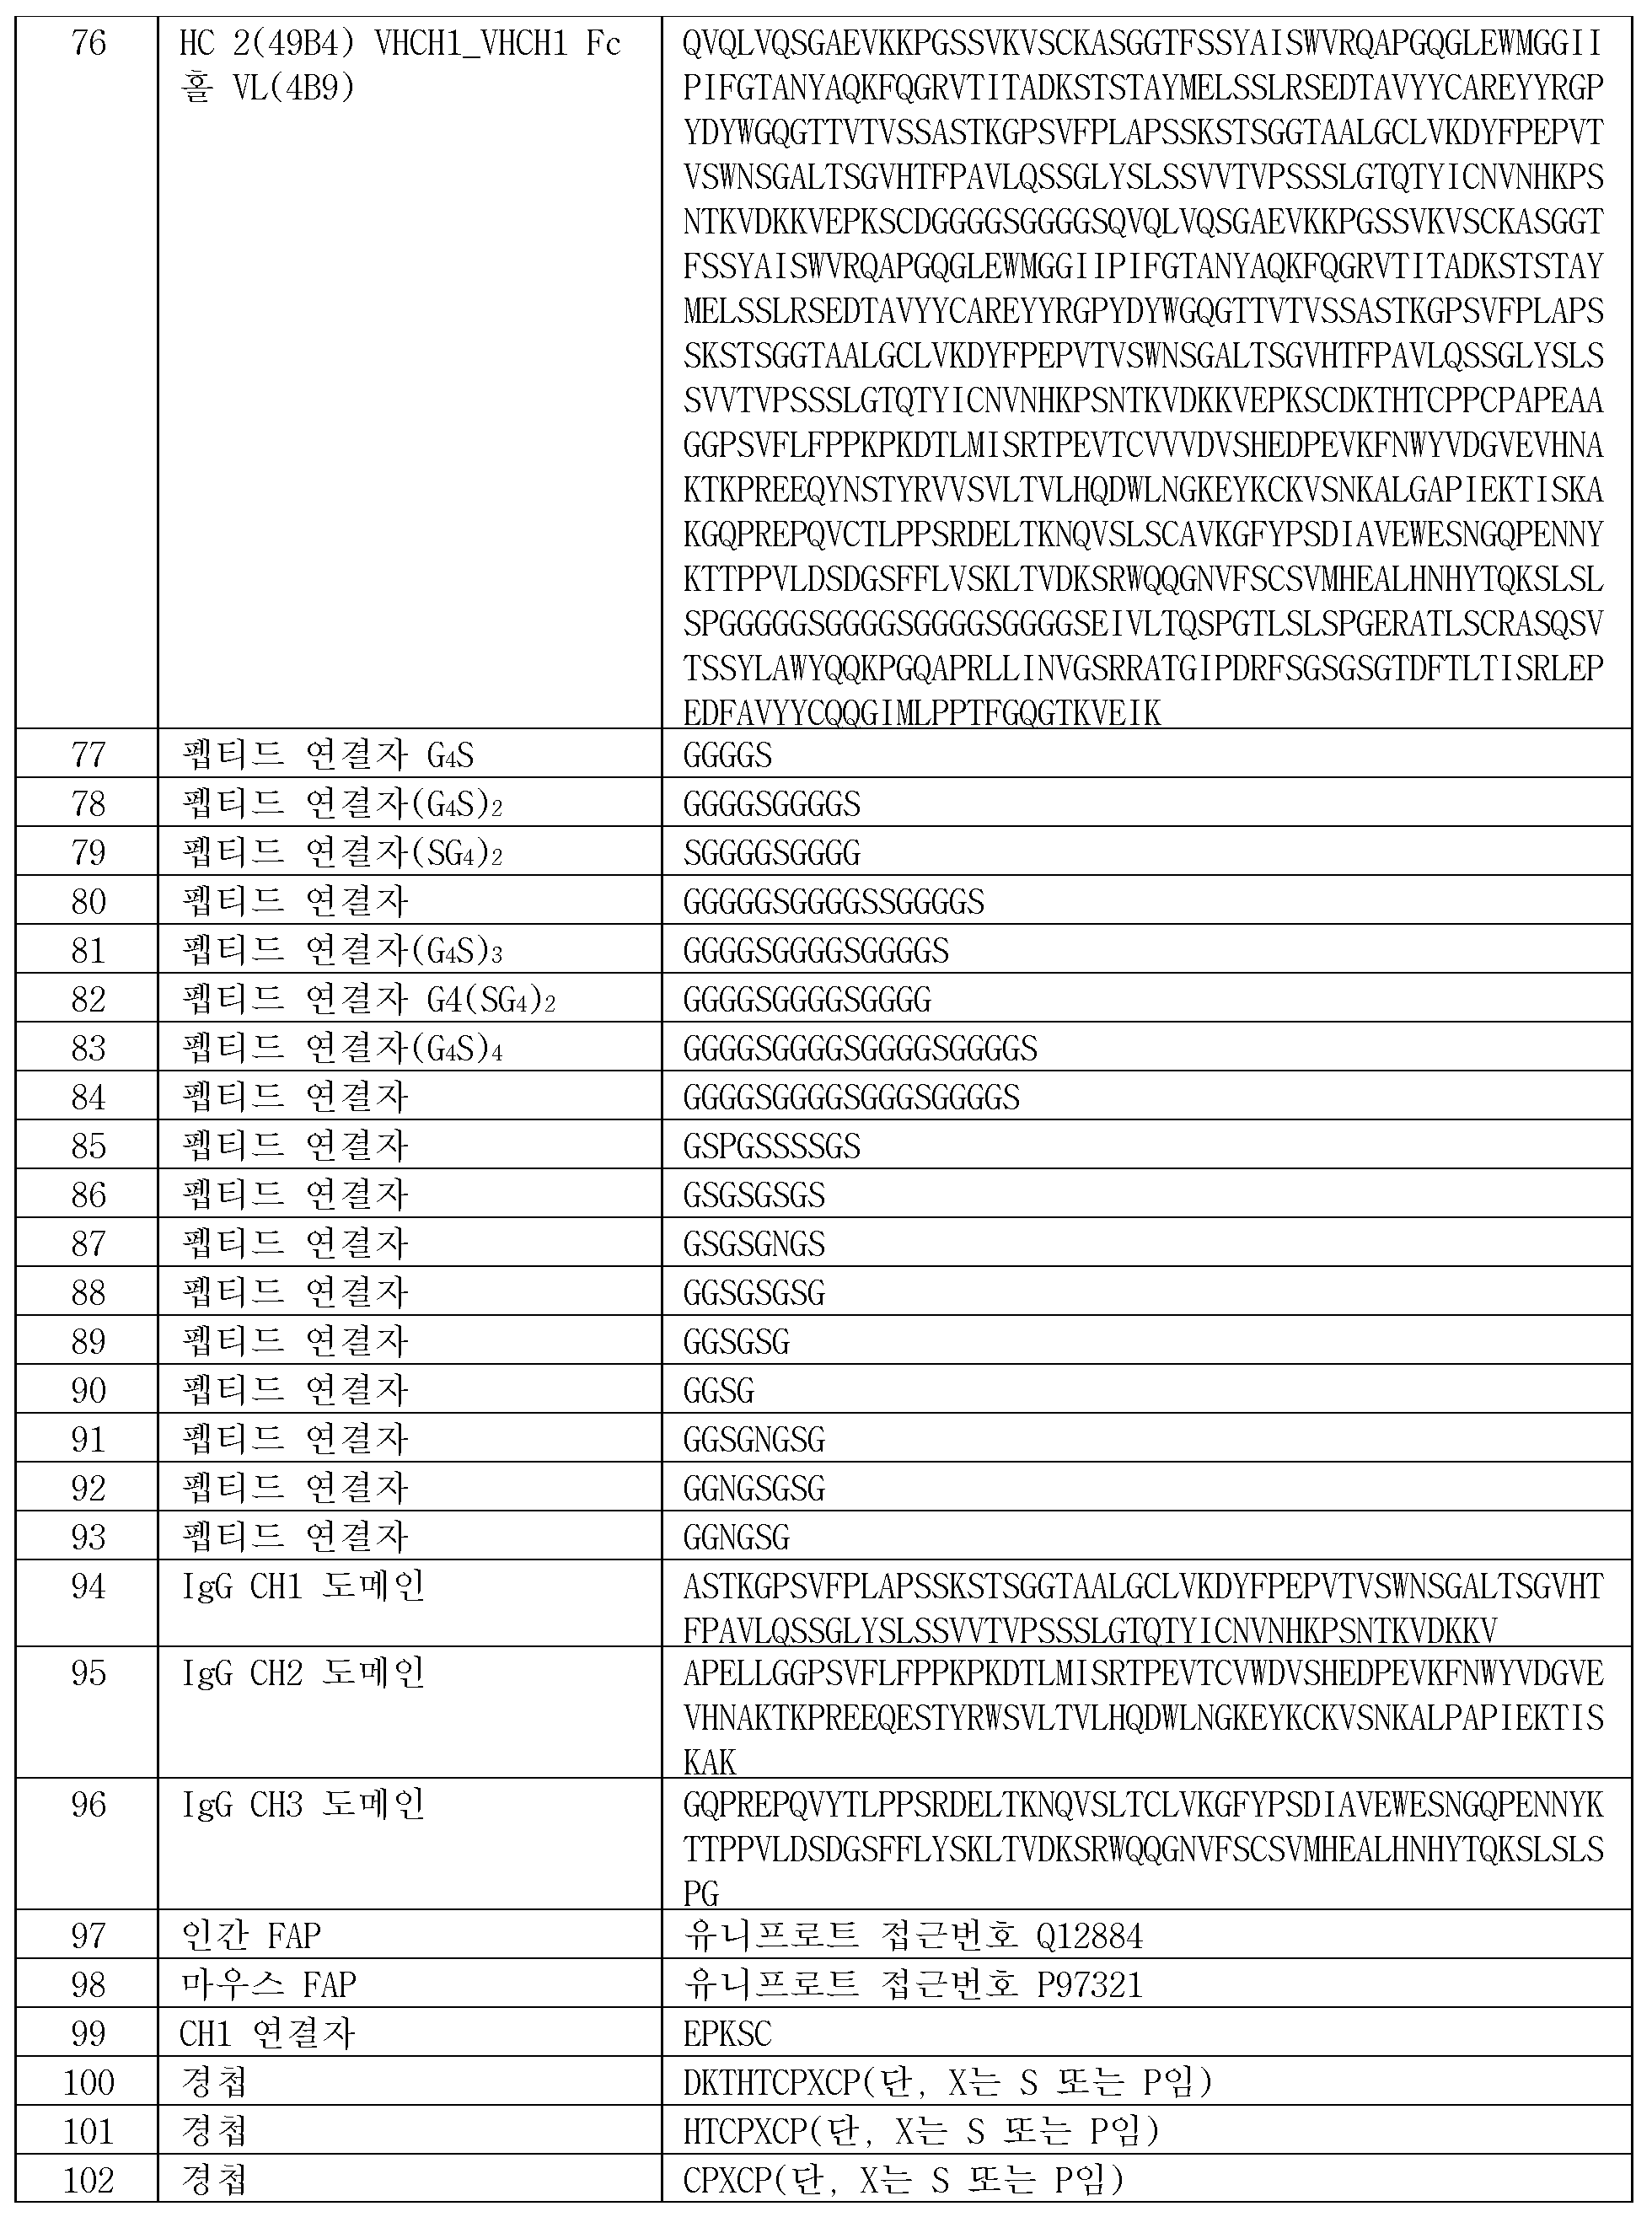
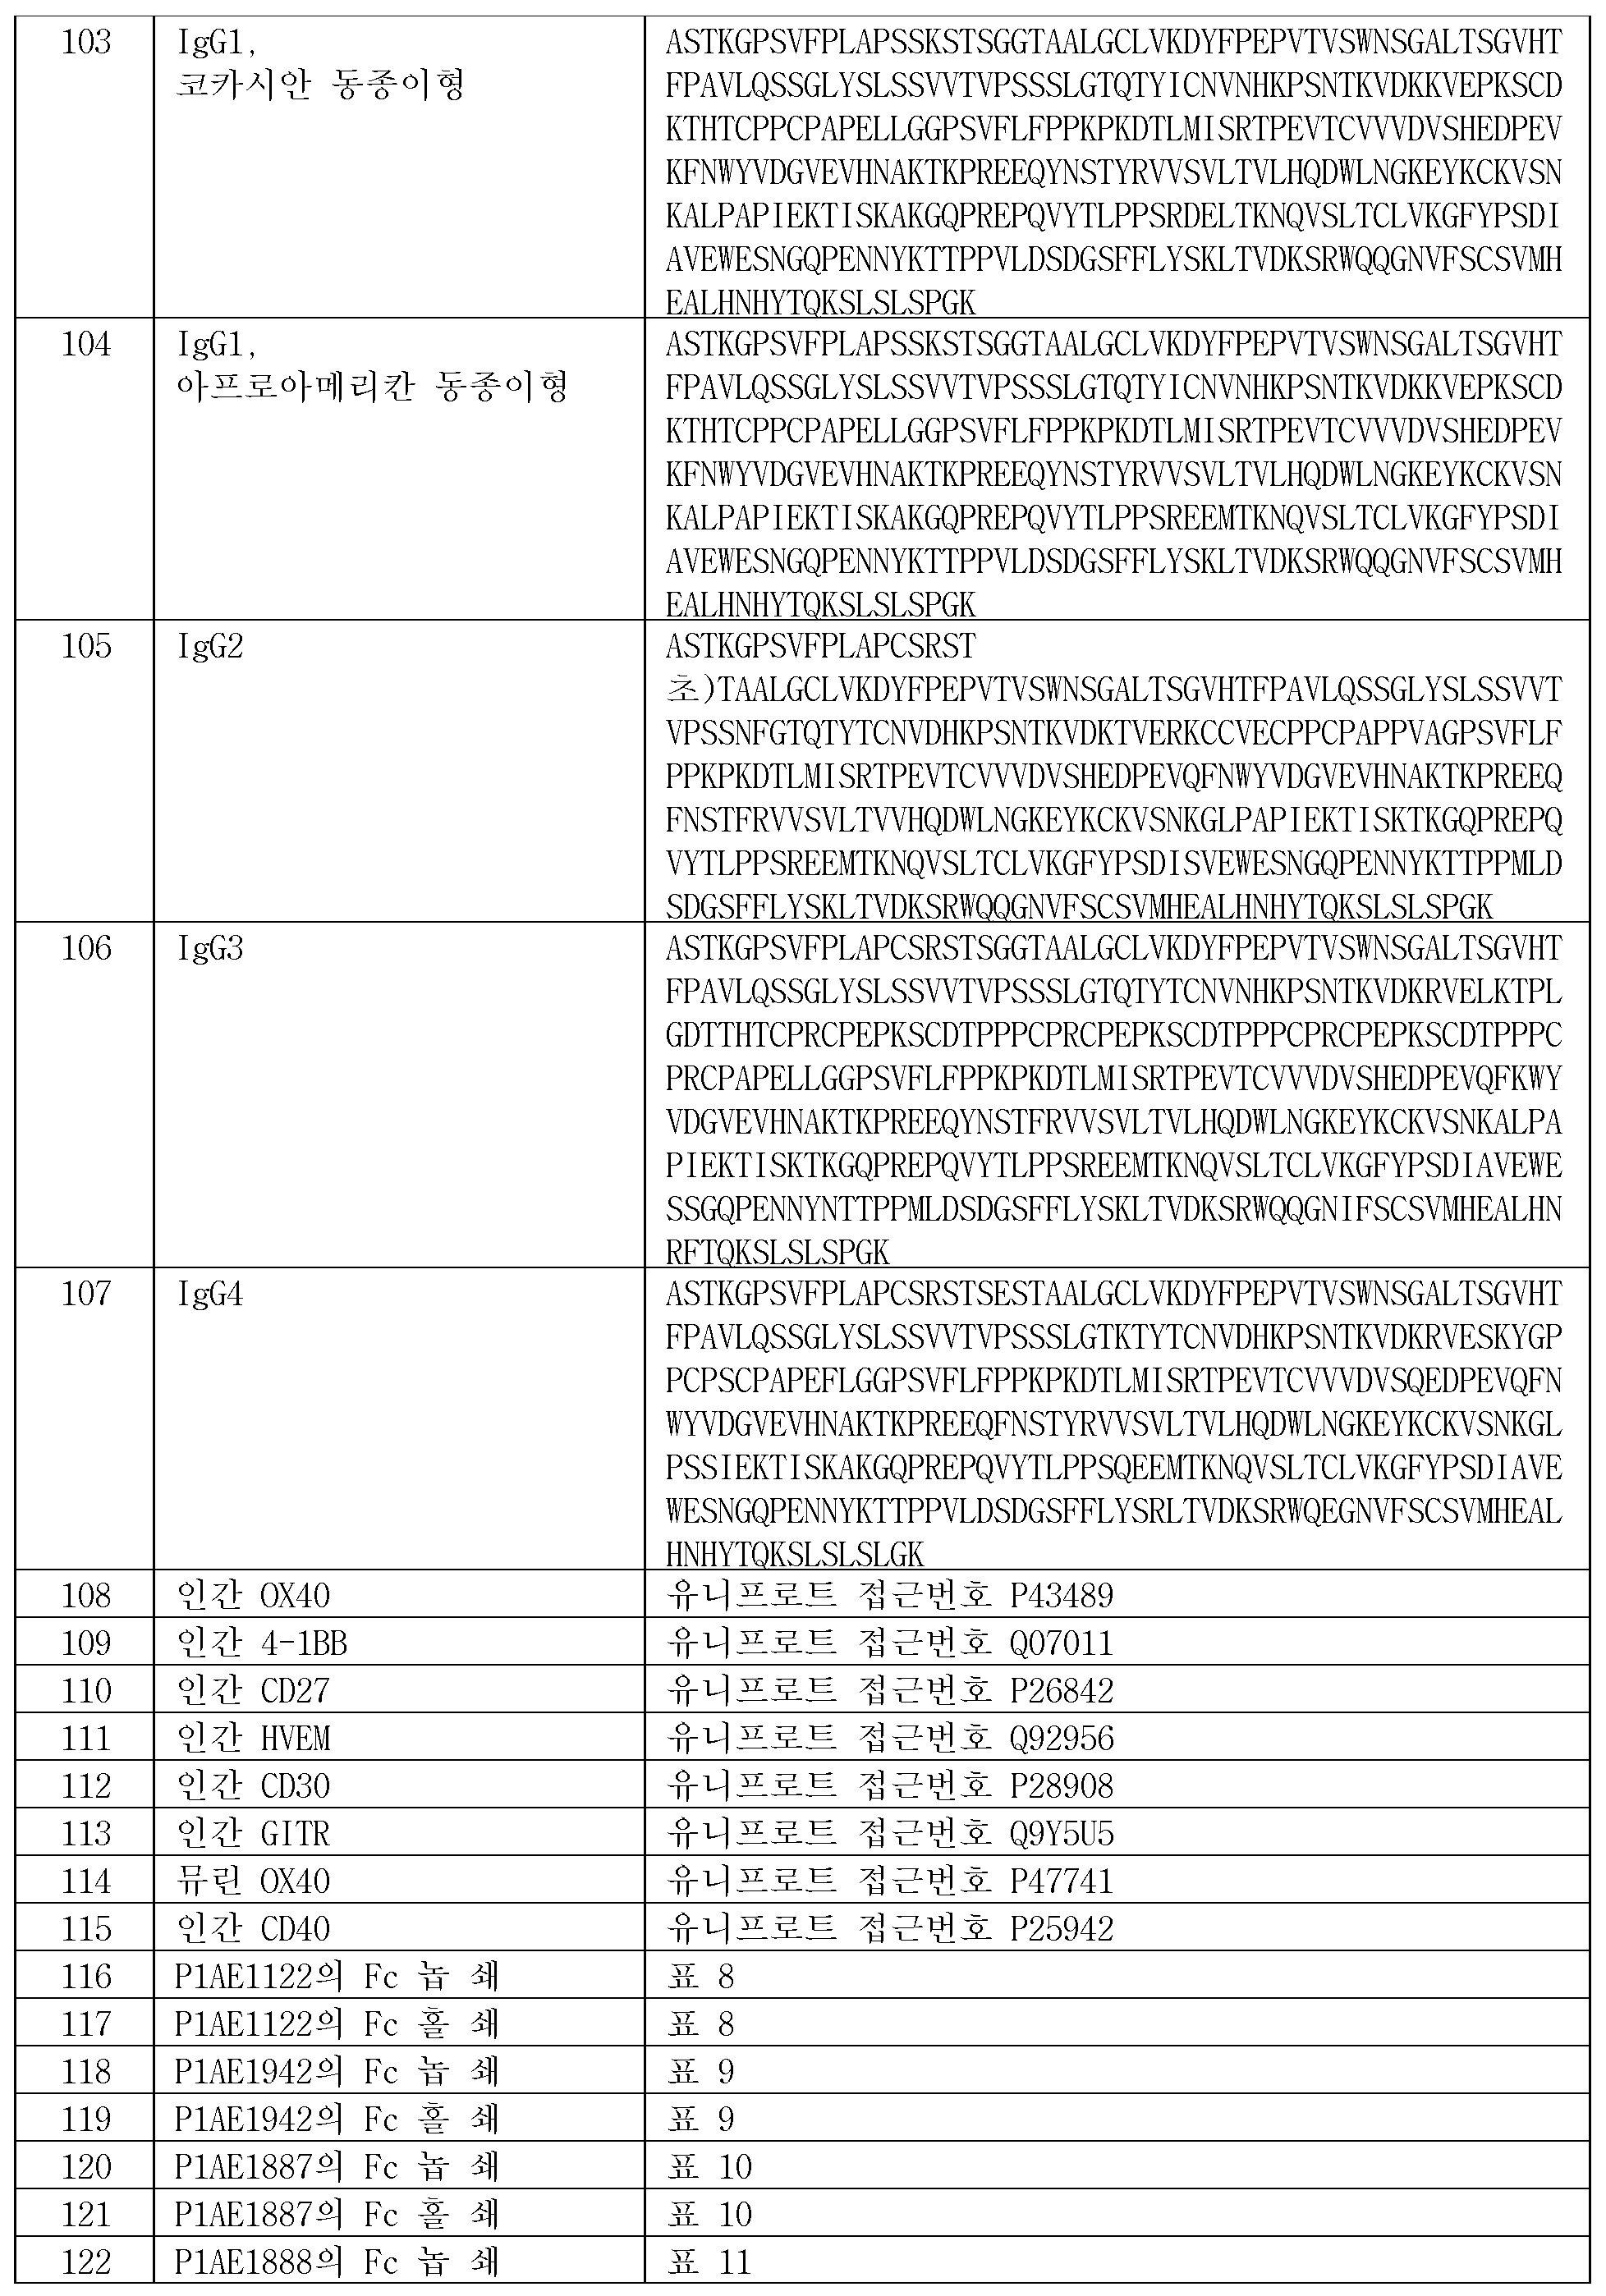
"CH1 도메인"은 대략 EU 위치 118(카밧에 따른 EU 번호부여 체계)로부터 EU 위치 215로 이어지는 항체 중쇄 폴리펩티드의 부분을 나타낸다. 하나의 양상에서, CH1 도메인은 ASTKGPSVFP LAPSSKSTSG GTAALGCLVK DYFPEPVTVS WNSGALTSGV HTFPAVLQSS GLYSLSSVVT VPSSSLGTQT YICNVNHKPS NTKVDKKV(서열번호 94)의 아미노산 서열을 갖는다. 통상적으로, EPKSC(서열번호 99)의 아미노산 서열을 갖는 분절이 이어져 CH1 도메인을 경첩부에 연결한다.
용어 "경첩부"는 야생형 항체 중쇄에서 CH1 도메인과 CH2 도메인을 연결(예컨대 카밧 EU 번호 체계에 따라 대략 위치 216으로부터 대략 위치 320, 또는 대략 위치 226으로부터 대략 위치 230)하는 항체 중쇄 폴리펩티드의 부분을 나타낸다. 기타 IgG 아강(subclass)의 경첩부는 IgG1 아강 서열의 경첩부 시스테인 잔기에 의한 정렬에 의해 결정될 수 있다. 일반적으로, 경첩부는 일치하는 아미노산 서열을 갖는 2개의 폴리펩티드로 이루어진 이량체 분자이다. 일반적으로, 경첩부는 25개 이하의 아미노산 잔기를 갖고 회합되는 결합 부위가 독립적으로 움직일 수 있도록 가요성이 있다. 경첩부는 3개의 도메인인 상부 경첩 도메인, 중간부 경첩 도메인 하부 경첩 도메인으로 하위 분류될 수 있다(예컨대 문헌[Roux, et al., J. Immunol. 161 (1998) 4083] 참고).
하나의 양상에서, 경첩부는 아미노산 서열 DKTHTCPXCP(서열번호 100)를 갖고, 여기서 X는 S 또는 P이다. 하나의 양상에서, 경첩부는 아미노산 서열 HTCPXCP(서열번호 101)를 갖고, 여기서 X는 S 또는 P이다. 하나의 양상에서, 경첩부는 아미노산 서열 CPXCP(서열번호 102)를 갖고, 여기서 X는 S 또는 P이다.
본원에 사용된 용어 "Fc 도메인" 또는 "Fc 영역"은 불변부의 적어도 일부를 함유하는 항체 중쇄의 C-말단부로 정의된다. 상기 용어는 고유 서열 Fc 영역 및 변이 Fc 영역을 포함한다. 하나의 양상에서, 인간 IgG 중쇄 Fc 도메인은 Cys226, Pro230 또는 Ala231로부터 중쇄의 카복시 말단으로 이어진다. 그러나, Fc 영역의 C-말단 리신(Lys447)은 존재하거나 존재하지 않을 수 있다. IgG Fc 영역은 IgG CH2 및 IgG CH3 도메인을 포함한다.
인간 IgG Fc 영역의 "CH2 도메인은" 통상적으로 대략 EU 위치 231(카밧에 따른 EU 번호부여 체계)의 아미노산 잔기로부터 대략 EU 위치 340의 아미노산 잔기로 이어진다. 하나의 양상에서, CH2 도메인은 APELLGGPSV FLFPPKPKDT LMISRTPEVT CVWDVSHEDP EVKFNWYVDG VEVHNAKTKP REEQESTYRW SVLTVLHQDW LNGKEYKCKV SNKALPAPIE KTISKAK(서열번호 95)의 아미노산 서열을 갖는다. CH2 도메인은 또 다른 도메인과 밀접하여 짝지어지지 않는다는 점에 있어서 고유하다. 오히려, 2개의 N-연결된 탄수화물 분지쇄가 완전 Fc 영역의 2개의 CH2 도메인들 사이에 개재된다. 상기 탄화수소가 도메인-도메인 짝지음에 대한 대체를 제공하고 CH2 도메인을 안정화시키는데 도움을 주는 것으로 추측된다(문헌[Burton, Mol. Immunol. 22 (1985) 161-206]). 하나의 양태에서, 탄화수소 쇄는 CH2 도메인에 부착된다. 본원에서, CH2 도메인은 고유서열 CH2 도메인 또는 변이 CH2 도메인일 수 있다.
"CH3 도메인"은 대략 EU 위치 341(카밧에 따른 EU 번호부여 체계)로부터 EU 위치 446으로 이어지는 항체 중쇄 폴리펩티드의 부분을 나타낸다. 하나의 양상에서, CH3 도메인은 GQPREPQVYT LPPSRDELTK NQVSLTCLVK GFYPSDIAVE WESNGQPENN YKTTPPVLDS DGSFFLYSKL TVDKSRWQQG NVFSCSVMHE ALHNHYTQKS LSLSPG(서열번호 96)의 아미노산 서열을 갖는다. 여기서, CH3 영역은 고유 서열 CH3 도메인 또는 변이 CH3 도메인(예컨대 이의 하나의 쇄에 도입된 돌출부(놉(knob)) 및 이의 또 다른 쇄에 상응하게 도입된 공동(홀(hole))을 갖는 CH3 도메인, 명확히 본원에 참조로 혼입되는 US 5,821,333 참고)일 수 있다. 이러한 변이 CH3 도메인은 본원에 기재된 바와 같이 2개의 비일치 항체 중쇄의 이종이량체화(heterodimerization)를 촉진하는데 사용될 수 있다. 하나의 양태에서, 인간 IgG 중쇄 Fc 영역은 Cys226 또는 Pro230으로부터 중쇄의 카복시 말단으로 이어진다. 그러나, Fc 영역의 C-말단 리신(Lys447)은 존재하거나 존재하지 않을 수 있다. 본원에서 달리 특정되지 않는 한, Fc 영역 또는 불변부의 아미노산 잔기의 번호부여는 문헌[Kabat et al., Sequences of Proteins of Immunological Interest, 5th Ed. Public Health Service, National Institutes of Health, Bethesda, MD, 1991]에 기재되어 있는 US 색인으로도 지칭되는 EU 번호부여 체계에 따른다.
"놉 인투 홀" 기술은, 예컨대 US 5,731,168; US 7,695,936; 문헌[Ridgway et al., Prot Eng 9, 617-621 (1996)] 및 문헌[Carter, J Immunol Meth 248, 7-15 (2001)]에 기재되어 있다. 일반적으로, 상기 방법은 제1 폴리펩티드의 계면에 돌출부(놉) 및 제2 폴리펩티드의 계면에 상응하는 공동(홀)을 도입함을 수반하여, 상기 돌출부가 상기 공동에 자리잡음으로써 이종이량체 형성 및 후부(hinder) 동종 이량체 형성이 촉진된다. 돌출부는 제1 폴리펩티드의 계면으로부터의 작은 아미노산 측쇄를 더 큰 측쇄(예컨대 티로신 또는 트립토판)으로 대체함으로써 구축된다. 돌출부와 동일하거나 유사한 크기의 상보적 공동은 제2 폴리펩티드의 계면에서 큰 아미노산 측쇄를 더 작은 것(예컨대 알라닌 또는 트레오닌)으로 대체함으로써 생성된다. 돌출부 및 공동은 폴리펩티드를 암호화하는 핵산을 변경함으로써, 예컨대 부위-특이성 돌연변이 생성 또는 펩티드 합성에 의해 제조될 수 있다. 특정 양태에서, 놉 변형은 Fc 도메인 의 2개의 아단위 중 하나에서 T366W의 아미노산 치환을 포함하고, 홀 변형은 Fc 도메인의 2개의 아단위 중 또 다른 하나에서 T366S, L368 및 Y407의 아미노산 치환을 포함한다. 더욱 특정한 양태에서, 놉 변형을 포함하는 Fc 도메인의 아단위는 S354C의 아미노산 치환을 포함하고, 홀 변형을 포함하는 Fc 도메인의 아단위는 Y349C의 아미노산 치환 추가로 포함한다. 이러한 2개의 시스테인 잔기의 도입은 Fc 영역의 2개의 아단위들간의 다이설파이드 가교가 형성됨을 야기하고, 이에 따라 이량체를 안정화시킨다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)]). 상기 번호부여는 문헌[EU index of Kabat et al, Sequences of Proteins of Immunological Interest, 5th Ed. Public Health Service, National Institutes of Health, Bethesda, MD, 1991]에 따른 것이다.
"면역글로불린의 Fc 영역에 등가인 영역"은 면역글로불린의 Fc 영역의 자연 발생 대립유전자 변이, 및 치환, 첨가 또는 삭제를 생성하되 효과기 기능(예컨대 항체 의존적 세포독성)을 매개하는 면역글로불린의 능력을 실질적으로 감소시키지 않는 변경을 갖는 변이체를 포함한다. 예컨대, 하나 이상의 아미노산은 생물학적 기능의 실질적인 손실 없이 면역글로불린의 Fc 영역의 N-말단 또는 C-말단으로부터 삭제될 수 있다. 이러한 변이는 당업계에 공지되어 있는 일반적인 법칙에 따라 활성에 최소의 효과를 갖도록 선택될 수 있다(예컨대 문헌[Bowie, J. U. et al., Science 247:1306-10 (1990)]).
용어 "야생형 Fc 도메인"은 자연에서 발견되는 Fc 도메인의 아미노산 서열과 일치하는 아미노산 서열을 나타낸다. 야생형 인간 Fc 도메인은 고유 인간 IgG1 Fc 영역(비A 및 A 동종이형), 고유 인간 IgG2 Fc 영역, 고유 인간 IgG3 Fc 영역, 고유 인간 IgG4 Fc 영역 및 이의 자연 발생 변이체를 포함한다. 야생형 Fc 영역은 서열번호 102(IgG1, 코카시안 동종이형), 서열번호 103(IgG1, 아프로아메리칸 동종이형), 서열번호 104(IgG2), 서열번호 105(IgG3) 및 서열번호 106(IgG4)에서 나타난다.
용어 "변이 (인간) Fc 도메인"은 야생형 (인간) Fc 도메인 아미노산 서열과는 하나 이상의 "아미노산 돌연변이"에 의해 상이한 아미노산 서열을 나타낸다. 하나의 양상에서, 변이 Fc 영역은 고유 Fc 영역에 비해 하나 이상, 예컨대 약 1 내지 약 10개의 아미노산 돌연변이를 갖고, 하나의 양상에서 고유 Fc 영역내에 약 1 내지 약 5개의 아미노산 돌연변이를 갖는다. 하나의 양상에서, (변이) Fc 영역은 야생형 Fc 영역과 약 95% 이상의 상동성을 갖는다.
용어 "효과기 기능"은 항체의 Fc 영역에 기인하는 생체활성을 지칭하고, 항체의 동종형에 따라 다르다. 항체 효과기 기능의 예는 C1q 결합 및 보체 의존적 세포독성(CDC), Fc 수용체 결합, 항체 의존적 세포 매개된 세포독성(ADCC), 항체 의존적 세포 식세포작용(ADCP), 시토카인 분비, 항원 제시 세포에 의한 면역 복합체 매개된 항원 함입, 세포 표면 수용체(예컨대 B 세포 수용체)의 하향조절 및 B 세포 활성화를 포함한다.
Fc 수용체 결합 의존적 효과기 기능은 조혈 세포의 특화된 세포 표면 수용체인 Fc 수용체(FcR)를 갖는 항체의 Fc 영역의 상호작용에 의해 매개될 수 있다. Fc 수용체는 면역글로불린 상과에 속하고, 항체 의존적 세포 매개된 세포독성(ADCC)을 통해 면역 복합체의 식세포작용에 의한 항원-코팅된 병원체의 제거 및 상응하는 항체로 코팅된 적혈구 및 다양한 기타 세포 표적(예컨대 종양 세포)의 용해 둘다를 매개하는 것으로 밝혀졌다(예컨대 문헌[Van de Winkel, J.G. Anderson, C.L., J. Leukoc. Biol. 49 (1991) 511-524] 참고). FcR은 면역글로불린 동종형에 대한 이의 특이성에 의해 정의된다. IgG 항체에 대한 Fc 수용체는 FcγR로서 지칭된다. Fc 수용체 결합은, 예컨대 문헌[J.V. and Kinet, J.P., Annu. Rev. Immunol. 9 (1991) 457-492]; 문헌[Capel, P.J., et al., Immunomethods 4 (1994) 25-34]; 문헌[de Haas, M., et al., J. Lab. Clin. Med. 126 (1995) 330-341]; 및 문헌[Gessner, J.E., et al., Ann. Hematol. 76 (1998) 231-248]에 기재되어 있다.
IgG 항체의 Fc 영역(FcγR)에 대한 수용체의 가교결합은 매우 다양한 효과기 기능, 예컨대 식세포작용, 항체 의존적 세포독성, 염증 매개자의 방출, 및 면역 복합체 말소 및 항체 생성의 조절을 유발한다. 인간에서, 3개의 강의 FcγR이 특성규명되어 있고, 이는 하기와 같다:
- FcγRI(CD64)는 단량체 IgG에 높은 친화도로 결합하고, 대식세포, 단핵구, 호중구 및 호산구에 발현된다. E233-G236(카밧의 EU 색인에 따른 번호부여), P238, D265, N297, A327 및 P329(카밧의 EU 색인에 따른 번호부여) 중 하나 이상의 아미노산 잔기에서 Fc 영역 IgG의 변형은 FcγRI에 대한 결합을 감소시킨다. 위치 323-236에서 IgG2 잔기는 IgG1 및 IgG4로 치환되어 FcγRI에 대한 결합을 103배 감소시켰고 항체 감수성 적혈구 세포에 대한 인간 단핵구의 반응을 제거하였다(문헌[Armour, K.L., et al., Eur. J. Immunol. 29 (1999) 2613-2624]).
- FcγRII(CD32)은 IgG와 중간 내지 낮은 친화도로 결합 복합체화되고 야생 발현된다. 상기 수용체는 2개의 아형인 FcγRIIA 및 FcγRIIB로 나뉜다. Fc감RIIA는 살해(예컨대 대식세포, 단핵구 또는 호중구)에 수반되는 것으로 밝혀졌고, 살해 과정을 활성화시킬 수 있는 것으로 보인다. FcγRIIB는 억제 과정에서 주요 역할을 하는 것으로 보이고, B 세포, 대식세포, 비만세포 및 호산구에서 발견된다. B 세포에서, 이는 면역글로불린 생성 및 예컨대 IgE 강으로의 동종형 전환을 더욱 억제하는 기능을 하는 것으로 보인다. 대식세포에서, FcγRIIB는 FcγRIIA를 통해 매개된 식세포작용을 억제하는 작용을 한다. 호산구 및 비만세포에서, B 형태는 개별 수용체에 대한 IgE 결합을 통해 이러한 세포의 활성화를 억제하는데 도움을 줄 수 있다. FcγRIIA에 대한 감소된 결합은, 예컨대 E233-G236(카밧의 EU 색인에 따른 번호부여), P238, D265, N297, A327, P329, D270, Q295, A327, R292 및 K414의 아미노산 서열 중 하나 이상에서 돌연변이를 갖는 IgG Fc 영역을 포함하는 항체에서 발견된다.
- FcγRIII(CD16)는 IgG에 중간 내지 낮은 친화도로 결합하고, 2개의 유형으로서 존재한다. FcγRIIIA는 NK 세포, 대식세포, 호산구, 일부 단핵구 및 T 세포에서 발견되고, ADCC를 매개한다. FcγRIIIB는 호중구에 고도로 발현된다. FRγIIIA에 대한 감소된 결합은, 예컨대 E233-G236(카밧의 EU 색인에 따른 번호부여), P238, D265, N297, A327, P329, D270, Q295, A327, S239, E269, E293, Y296, V303, A327, K338 및 D376의 아미노산 잔기 중 하나 이상에서 돌연변이를 갖는 IgG Fc 영역을 포함하는 항체에서 발견된다.
Fc 수용체에 대한 인간 IgG1의 결합 부위(전술한 돌연변이 부위)의 맵핑(mapping) 및 FcγRI 및 FcγRIIA에 대한 결합을 측정하는 방법은 문헌[Shields, R.L., et al. J. Biol. Chem. 276 (2001) 6591-6604]에 기재되어 있다.
용어 "ADCC" 또는 "항체 의존적 세포독성"은 Fc 수용체 결합에 의해 매개되는 기능이고 효과기 세포의 존재하에 본원에 보고된 항체에 의한 표적 세포의 용해를 지칭한다. 초기 단계 매개 ADCC를 도입하는 항체의 능력은 Fcγ 수용체 발현 세포, 예컨대 FcγRI 및/또는 FcRγRIIA를 재조합 발현하는 세포 또는 NK 세포(FcγIIIA는 필수적으로 발현함)에 대한 결합을 측정함으로써 시험된다. 특히, NK 세포에서 FcγR에 대한 결합이 측정된다.
"활성화 Fc 수용체"는 항체의 Fc 영역에 의한 후속의 인게이지먼트(engagement)가 수용체-보유 세포를 자극하여 효과기 기능을 수행하게 하는 신호전달 사건을 야기하는 Fc 수용체이다. 활성화 Fc 수용체는 FcγRIIIa(CD16a), FcγRI(CD64), FcγRIIa(CD32) 및 FcαRI(CD89)를 포함한다. 특정 활성화 Fc 수용체는 인간 FcγRIIIa이다(유니프로트 접근번호 P08637, 버전 141).
"종양 괴사 인자 수용자 상과" 또는 "TNF 수용체 상과"는 현재 27개의 수용체로 이루어진다. 이는 세포외 시스테인-풍부 도메인(CRD)을 통한 종양 괴사 인자(TNF)와 결합하는 능력에 의해 특징지어지는 시토카인 수용체의 군이다. 이러한 위반복(pseudorepeat)은 수용체 쇄내의 고도로 보존된 시스테인 잔기에 의해 생성된 쇄간 다이설파이드에 의해 한정된다. 신경 성장 인자(NGF)를 배제하고, 모든 TNF는 원형 TNF-알파와 동종이다. 이의 활성화된 형태에서, TNF 수용체의 대다수는 원형질막에서 삼량체 복합체를 형성한다. 따라서, 대다수의 TNF 수용체는 막통과 도메인(TMD)을 함유한다. 또한, 이러한 수용체 중 몇몇은 리간드 결합 후 캐스파제-상호작용 단백질을 사용하여 캐스파제 활성화의 외인성 경로를 개시하는 세포내 사멸 도메인(DD)을 함유한다. 사멸 도메인을 결여하는 기타 TNF 상과 수용체는 TNF 수용체 관련 인자에 결합하고 증식 또는 분화를 야기할 수 있는 세포내 신호전달 경로를 활성화시킨다. 또한, 이러한 수용체는 세포자연사를 개시할 수 있지만, 간접적인 기작을 통해 개시한다. 세포자연사를 조절하는 것 이외에도, 몇몇 TNF 상과 수용체는 면역 세포 기능, 예컨대 B 세포 항상성 및 활성화, 자연 살해 세포 활성화, 및 T 세포 공동자극을 조절하는데 수반된다. 몇몇 다른 것들은 세포 유형-특이적 반응, 예컨대 모공 발달 및 파골세포 발달을 조절한다. TNF 수용 상과의 구성원은 하기를 포함한다: 종양 괴사 인자 수용체 1(1A)(TNFRSF1A, CD120a), 종양 괴사 인자 수용체 2(1B)(TNFRSF1B, CD120b), 림포톡신 베타 수용체(LTBR, CD18), OX40(TNFRSF4, CD134), CD40(Bp50), Fas 수용체(Apo-1, CD95, FAS), 디코이(decoy) 수용체 3(TR6, M68, TNFRSF6B), CD27(S152, Tp55), CD30(Ki-1, TNFRSF8), 4-1BB(CD137, TNFRSF9), DR4(TRAILR1, Apo-2, CD261, TNFRSF10A), DR5(TRAILR2, CD262, TNFRSF10B), 디코이 수용체 1(TRAILR3, CD263, TNFRSF10C), 디코이 수용체 2(TRAILR4, CD264, TNFRSF10D), 랭크(RANK)(CD265, TNFRSF11A), 오스테오프로테그린(Osteoprotegerin)(OCIF, TR1, TNFRSF11B), 트윅(TWEAK) 수용체(Fn14, CD266, TNFRSF12A), 타시(TACI)(CD267, TNFRSF13B), 바프(BAFF) 수용체(CD268, TNFRSF13C), 헤르페스바이러스 진입 매개자(HVEM, TR2, CD270, TNFRSF14), 신경 성장 인자 수용체(p75NTR, CD271, NGFR), B 세포 성숙 항원(CD269, TNFRSF17), 글루코코르티코이드 유도된 TNFR-관련(GITR, AITR, CD357, TNFRSF18), TROY(TNFRSF19), DR6(CD358, TNFRSF21), DR3(Apo-3, TRAMP, WS-1, TNFRSF25) 및 엑토디스플라신(Ectodysplasin) A2 수용체(XEDAR, EDA2R).
종양 괴사 수용체(TNFR) 과의 몇몇 구성원은 초기 T 세포 활성화에 기능하여 T 세포 반응을 유지한다. 용어 "공동자극 TNF 수용체 과 구성원" 또는 "공동자극 TNF 과 수용체"는 T 세포의 증식 및 시토카인 생성을 공동촉질할 수 있는 TNF 수용체 과 구성원의 하위군을 지칭한다. 달리 제시되지 않는 한, 상기 용어는 임의의 척추동물 출처, 예컨대 포유동물, 예를 들어 영장류(예컨대 인간), 비인간 영장류(예컨대 시노몰거스 원숭이) 및 설치류(예컨대 마우스 및 래트)로부터의 임의의 고유 TNF 과 수용체를 지칭한다. 본 발명의 특정 양태에서, 공동자극 TNF 수용체 과 구성원은 OX40(CD134), 4-1BB(CD137), CD40, CD27, HVEM(CD270), CD30, 및 GITR로 이루어진 군으로부터 선택되고, 이 모두는 T 세포에 공동자극 효과를 줄 수 있다. 보다 특히, 본 발명의 항원 결합 분자는 공동자극 TNF 수용체 과 구성원 OX40에 특이적으로 결합가능한 하나 이상의 잔기를 포함한다.
TNF 수용체 과 구성원의 추가 정보, 특히 서열은 공개 접근가능 데이터베이스, 예컨대 유트프로트(www.uniprot.org)로부터 입수할 수 있다. 예컨대 인간 공동자극 TNF 수용체는 인간 OX40(유니프로트 접근번호 P43489, 서열번호108), 인간 4-1BB(유니프로트 접근번호 Q07011, 서열번호109), 인간 CD27(유니프로트 접근번호 P26842, 서열번호110), 인간 HVEM(유니프로트 접근번호 Q92956, 서열번호111), 인간 CD30(유니프로트 접근번호 P28908, 서열번호112), 인간 GITR(유니프로트 접근번호 Q9Y5U5, 서열번호113) 및 인간 CD40(유니프로트 접근번호 P25942, 서열번호 115)의 아미노산 서열을 갖는다.
본원에 사용된 용어 "OX40"은 임의의 척추동물 출처, 예컨대 포유동물, 예를 들어 영장류(예컨대 인간) 및 설치류(예컨대 마우스 및 래트)로부터의 임의의 고유 OX40을 지칭한다. 상기 용어는 전장 미처리 OX40, 및 세포에서의 처리로부터 생성되는 임의의 형태의 OX40을 포괄한다. 또한, 상기 용어는 OX의 자연 발생 변이체, 예컨대 스플라이드 변이체 또는 대립유전자 변이체를 포괄한다. 예시적인 인간 OX40의 아미노산 서열은 서열번호 107(유니프로트 P43489, 버전 112)에 제시되고, 예시적인 뮤린 OX40의 아미노산 서열은 서열번호 113(유니프로트 P47741, 버전 101)에 제시되어 있다.
몇몇 공동자극 분자 중, 종양 괴사 인자(TNF) 수용체 과 구성원 OX40(CD134)는 효과기 및 기억 T 세포의 생존 및 항상성에 주요한 역할을 한다(문헌[Croft M. et al. (2009), Immunological Reviews 229, 173-191]). OX(CD134)는 몇몇 유형의 세포에 발현되고 감염, 종양 및 자가-항원에 대한 면역 반응을 조절하고, 이의 발현은 T 세포 NKT 세포, NK 세포 및 호중구의 표면에 나타나고(문헌[Baumann R. et al. (2004), Eur. J. Immunol. 34, 2268-2275]), 다양한 자극 신호에 대한 응답에서 확고하게 유도성이거나 강하게 상향조절되는 것으로 나타난다. 분자의 기능적 활성은 모든 OX40 발현 세포 유형에 나타나고, 이는 OX40 매개된 체내 활성의 복합적 조절을 입증한다. T 세포 수용체 유발과의 조합으로, T 세포에서 자연 리간드 또는 작용성 항체에 의한 OX40 인게이지먼트는 PI3K 및 NFκB 신호전달 경로의 상승효과적 활성화를 야기한다(문헌[Song J. et al. (2008) J. Immunology 180(11), 7240-7248]). 결과적으로, 이는 향상된 증식, 증가된 시토카인 수용체와 시토카인 생성, 및 활성화된 T 세포의 보다 우수한 생존을 야기한다. 효과기 CD4+ 또는 CD8+ T 세포에서의 공동자극 이외에도, 최근, OX40 유발이 T 조절 세포의 발달 및 면역억제 기능을 억제하는 것으로 나타났다. 이러한 효과는, 적어도 부분적으로는, 항종양 또는 항미생물 면역 반응의 활성 강화를 야기할 수 있다. OX40 인게이지먼트가 T 세포 집단을 확장하고 시토카인 분비를 촉진하고 항미생물 면역 반응을 지원할 수 있음을 전제로, 리간드 OX40L의 항체 및 가용성 형태를 비롯한 작용제는 다양한 전임상 종양 모델에서 성공적으로 사용되어 왔다(문헌[Weinberg et al. (2000), J. Immunol. 164, 2160-2169]).
용어 "항-OX40 항체", "항-OX40", "OX40 항체" 및 "OX40에 특이적으로 결합하는 항체"는 OX40에 충분한 친화도로 결합가능하여 OX40의 표적화에서 진단제 및/또는 치료제로서 유용한 항체를 지칭한다. 하나의 양태에서, 비관련 비OX40 단백질에 대한 항-OX40 항체의 결합도는, 예컨대 유동 세포측정법(FACS)에 의해 측정되어 OX40에 대한 항체의 결합의 약 10% 미만이다. 특정 양태에서, OX40은 1μM 이하, 100 nM 이하, 10 nM 이하, 1 nM 이하, 0.1 nM 이하, 0.01 nM 이하 또는 0.001 nM 이하(예컨대 10-6 M 이하, 예컨대 10-68 내지 10-13 M, 예컨대 10-8 내지 10-10 M)의 해리 상수(Kd)를 갖는다.
본원에 사용된 용어 "4-1BB" 또는 "CD137"은 달리 제시되지 않는 한 임의의 척추동물 출처, 예컨대 포유동물, 예를 들어 영장류(예컨대 인간) 및 설치류(예컨대 마우스 및 래트)로부터의 임의의 고유 4-1BB를 지칭한다. 상기 용어는 전장 미처리된 4-1BB, 및 세포에서의 처리로부터 생성된 임의의 형태의 4-1BB를 포괄한다. 또한, 상기 용어는 4-1BB의 자연 발생 변이체, 예컨대 스플라이스 변이체 도는 대립유전자 변이체를 포괄한다. 예시적인 인간 4-1BB는 서열번호 109(유니프로트 접근번호 Q07011)에 제시되어 있다.
용어 "항-4-1BB 항체", "항-4-1BB", "4-1BB 항체" 및 "4-1BB에 특이적으로 결합하는 항체"는 4-1BB에 충분한 친화도로 결합가능하여 4-1BB의 표적화에서 진단제 및/또는 치료제로서 유용한 항체를 지칭한다. 하나의 양태에서, 비관련 비4-1BB 단백질에 대한 항-4-1BB 항체의 결합도는, 예컨대 방사능면역측정법(RIA) 또는 FACS에 의해 측정되어 4-1BB에 대한 항체의 결합의 약 10% 미만이다. 특정 양태에서, 4-1BB는 1μM 이하, 100 nM 이하, 10 nM 이하, 1 nM 이하, 0.1 nM 이하, 0.01 nM 이하 또는 0.001 nM 이하(예컨대 10-6 M 이하, 예컨대 10-68 내지 10-13 M, 예컨대 10-8 내지 10-10 M)의 해리 상수(Kd)를 갖는다. 특히 항-4-1BB 항체는 US 7,288,638에 개시되어 있는 클론 20H4.9이다.
본원에 사용된 용어 "CD40"은 달리 제시되지 않는 한 임의의 척추동물 출처, 예컨대 포유동물, 예를 들어 영장류(예컨대 인간) 및 설치류(예컨대 마우스 및 래트)로부터의 임의의 고유 CD40을 지칭한다. 상기 용어는 전장 미처리된 CD40, 및 세포에서의 처리로부터 생성된 임의의 형태의 CD40를 포괄한다. 또한, 상기 용어는 CD40의 자연 발생 변이체, 예컨대 스플라이스 변이체 도는 대립유전자 변이체를 포괄한다. 예시적인 인간 CD40는 서열번호 115(유니프로트 접근번호 P25942, 버전 200)에 제시되어 있다. CD40 항체는 TNF-R 과에 속하는 50 kDa의 세포 표면 당단백질이다(문헌[Stamenkovic et al. (1989), EMBO J. 8: 1403-10]). CD40은 다수의 정상 및 종양 세포 유형, 예컨대 B 림프구, 수지상세포, 단핵구, 대식세포, 흉선 상피, 섬유아세포 및 평활근 세포에 발현된다. CD40은 모든 B 림프종에 발현되고, 성숙 신호, 예컨대 IFN-감마 및 GM-CSF에 의해 항원 제시 세포(APC)에서 상향조절된다. 또한, CD40은 단핵구의 기능 수지상세포(DC)로의 분화를 유도하고 APC-CD40 유도된 사이토카인을 통해 NK 세포의 세포용해 활성을 강화시킨다. 따라서, CD40은 APC의 성숙, 보조 사이토카인의 분비, 공동자극 분자의 상향조절 및 효과기 기능의 강화에 의해 면역 반응의 개시 및 강화에 필수적인 역할을 한다.
본원에 사용된 용어 "CD40 작용제"는 CD40/CD40L 상호작용에 작용하는 임의의 잔기를 포함한다. 이러한 맥락에 사용되는 CD40은 바람직하게는 인간 CD30이고, 따라서 CD40 작용제는 바람직하게는 인간 CD40의 작용제이다. 전형적으로는, 상기 잔기는 작용성 CD40 항체 또는 항체 단편일 수 있다.
용어 "항-CD40 항체", "항-CD40", "CD40 항체" 및 "CD40에 특이적으로 결합하는 항체"는 CD40에 충분한 친화도로 결합가능하여 CD40의 표적화에서 진단제 및/또는 치료제로서 유용한 항체를 지칭한다. 하나의 양태에서, 비관련 비CD40 단백질에 대한 항-CD40 항체의 결합도는, 예컨대 RIA 또는 FACS에 의해 측정되어 CD40에 대한 항체의 결합의 약 10% 미만이다. 특정 양태에서, CD40은 1μM 이하, 100 nM 이하, 10 nM 이하, 1 nM 이하, 0.1 nM 이하, 0.01 nM 이하 또는 0.001 nM 이하(예컨대 10-6 M 이하, 예컨대 10-68 내지 10-13 M, 예컨대 10-8 내지 10-10 M)의 해리 상수(Kd)를 갖는다.
용어 "펩티드 연결지"는 하나 이상, 바람직하게는 약 2 내지 20개의 아미노산을 포함하는 펩티드를 지칭한다. 펩티드 연결자는 당업계에 공지되어 있고 본원에 기재된다. 적합한 비면역원성 연결자 펩티드는, 예컨대 (G4S)n, (SG4)n 또는 G4(SG4)n 펩티드 연결자(여기서 n은 일반적으로 1 내지 10, 전형적으로는 1 내지 4, 특히 2의 수임), 즉 GGGGS(서열번호 77), GGGGSGGGGS(서열번호 78), SGGGGSGGGG(서열번호 79), GGGGGSGGGGSSGGGGS(서열번호 80), (G4S)3 또는 GGGGSGGGGSGGGGS(서열번호 81), GGGGSGGGGSGGGG 또는 G4(SG4)2(서열번호 82), (G4S)4 또는 GGGGSGGGGSGGGGSGGGGS(서열번호 83) 및 GGGGSGGGGSGGGSGGGGS(서열번호 84)로 이루어진 군으로부터 선택되되, GSPGSSSSGS(서열번호 85), GSGSGSGS(서열번호 86), GSGSGNGS(서열번호 87), GGSGSGSG(서열번호 88), GGSGSG(서열번호 89), GGSG(서열번호 90), GGSGNGSG(서열번호 91), GGNGSGSG(서열번호 92) 및 GGNGSG(서열번호 93)도 포함한다. 특히 관심이 되는 펩티드 연결자는 (G4S)2 또는 GGGGSGGGGS(서열번호 78) 및 GGGGSGGGGSGGGSGGGGS(서열번호 84)이다.
본 발명에 따른 "스페이서 도메인"은 접힘 후 구조적 도메인을 형성하는 폴리펩티드이다. 따라서, 스페이서 도메인은 10개 미만의 아미노산 잔기일 수 있되, 구조적으로 한정되어 결합 모티프를 고정하여야 한다. 예시적인 스페이서 도메인은 오량체 코일-코일, 항체 경첩부 또는 항체 Fc 영역, 또는 이의 단편이다. 스페이서 도메인은 이량체 도메인인데, 즉 스페이서 도메인은 이량체 기능을 제공가능한 아미노산을 포함한다.
본원에 사용된 용어 "아미노산"은 알라닌(3개 문자 코드: ala, 1개 문자 고드: A), 아르기닌, 아스파라긴(asn, N), 아스파트산(asp, D), 시스테인(cys, C), 글루타민(gln, Q), 글루탐산(glu, E), 글리신(gly, G), 히스티딘(his, H), 이소류신(ile, I), 류신(leu, L), 리신(lys, K), 메티오닌(met, M), 페닐알라닌(phe, F), 프롤린(pro, P), 세린(ser, S), 트레오닌(thr, T), 트립토판(trp, W), 티로신(tyr, Y) 및 발린(val, V)을 포함하는 자연 발생 카복시 α-아미노산의 군을 나타낸다.
"융합된" 또는 "연결된"은 성분(예컨대 항체 및 Fab 단편의 중쇄)가 펩티드 결합에 의해 직접적으로 또는 하나 이상의 펩티드 연결자를 통해 연결됨을 의미한다.
본원에 사용된 "융합 폴리펩티드" 또는 "단일 융합 폴리펩티드"는 상이한 성분, 예컨대 직접적으로 또는 펩티드 연결자를 통해 연결되는 TNF 리간드 과 구성원의 엑토도메인(ectodomain)으로 구성된 단일쇄 폴리펩티드를 지칭한다. "융합된" 또는 "연결된"은 성분(예컨대 TNF 리간드 과 구성원의 폴리펩티드 및 엑토도메인)이 직접적으로 또는 하나 이상의 펩티드 연결자를 통해 연결됨을 의미한다.
참조 폴리펩티드(단백질) 서열과 관련하여 "퍼센트(%) 아미노산 서열 일치성"은 최대 퍼센트 서열 일치성을 성취하기 위해 필요에 따라 서열을 정렬하고 갭(gap)을 도입한 후, 참조 폴리펩티드 서열내의 아미노산 잔기와 일치하는 후보 서열내의 아미노산 잔기의 퍼센트로서 정의되고, 임의의 보존적 치환은 서열 일치성의 일부로서 간주하지 않는다. 퍼센트 아미노산 서열 일치성을 측정하기 위한 정렬은 당업자에 의한 다양한 방법, 예컨대 공개 이용가능 컴퓨터 소프트웨어, 예컨대 BLAST, BLAST-2, ALIGN. SAWI 또는 메가라인(Megalign)(DNASTAR)을 사용하여 성취될 수 있다. 당업자는 서열을 정렬하기에 적절한 매개변수, 예컨대 비교되는 서열의 전장에 걸친 최대 정렬을 성취하는데 요하는 임의의 알고리즘을 결정할 수 있다. 그러나, 본원의 목적을 위해, % 아미노산 서열 일치성 값은 서열 비교 컴퓨터 프로그램 ALIGN-2를 사용하여 생성된다. ALIGN-2 서열 비교 컴퓨터 프로그램은 진엔테크 인코포레이티드(Genentech, Inc.)에 의해 제작되었고, 소스 코드는 미국 20559 워싱턴 D.C. 소재의 미국 저작권 청에서 사용자 문서에 의해 제출되었고, 미국 저작권 등록번호 TXU510087하에 등록되어 있다. ALIGN-2 프로그램은 미국 캘리포니아주 사우스 샌프란시스코 소재의 진엔테크 인코포레이티드로부터 공개 이용가능하고, 상기 소스 코드로부터 컴파일링될 수 있다. ALIGN-2 프로그램은 UNIX 작동 시스템, 예컨대 디지털 UNIX V4.0D를 사용하여 컴파일링되어야 한다. 모든 서열 비교 매개변수는 ALIGN-2 프로그램에 의해 설정되고 변경되지 않는다. ALIGN-2가 아미노산 서열 비교에 사용되는 경우, 소정 아미노산 서열 A와 소정 아미노산 서열 B의 % 아미노산 서열 일치성(이는 다르게는 소정 아미노산 서열 A가 소정 서열 아미노산 서열 B와 특정 %의 아미노산 서열 일치성을 갖거나 포함하는 것으로 표현될 수 있음)은 하기 수학식 1로 계산된다:
[수학식 1]
100 x X/Y
상기 식에서,
X는 서열 정렬 ALIGN-2 프로그램의 A 및 B의 정렬에서 상기 프로그램에 의해 일치하는 짝(identical match)으로서 계수된 아미노산 잔기의 개수이고;
Y는 B에서 아미노산 잔기의 총 개수이다. 아미노산 서열 A의 길이와 아미노산 서열 B의 길이가 동일하지 않은 경우, A 대 B의 % 아미노산 서열 일치성이 B 대 A의 % 아미노산 서열 동일성과 일치하지 않을 것임이 이해될 것이다. 달리 구체적으로 언급하지 않는 한, 본원에 사용된 모든 % 아미노산 서열 일치성 값은 ALIGN-2 컴퓨터 프로그램을 사용하여 바로 앞 문단에 기재된 바와 같이 수득된다.
특정 양태에서, 본원에 제시되는 항원 결합 분자의 아미노산 서열 변이체가 고려된다. 예컨대, 항원 결합 분자의 결합 친화도 및/또는 생물학적 특성을 향상시키는 것이 바람직할 수 있다. 하우언 결합 분자의 아미노산 서열 변이체는 적절한 변형을 분자를 암호화하는 뉴클레오티드 서열에 도입함으로써, 또는 펩티드 합성에 의해 제조될 수 있다. 예컨대, 이러한 변형은 항체의 아미노산 서열내의 잔기의 삭제 및/또는 삽입 및/또는 치환을 포함한다. 삭제, 삽입 및 치환의 임의의 조합이 최종 구조물이 도출되되 상기 최종 구조물이 목적 특성, 예컨대 항원 결합을 보유하도록 수행될 수 있다. 치환 돌연변이 생성에 관심이 되는 부위는 HVR 및 골격체(FR)를 포함한다. 보존적 치환은 표제 "바람직한 치환"으로 하기 표 A에 제시되고, 아미노산 측쇄 강 1 내지 6을 참조로 하여 추가로 후술된다. 아미노산 치환은 목적 활성(예컨대 유지된/향상된 항원 결합, 감소된 면역원성 또는 향상된 ADCC 또는 CDC)을 위해 선별된 관심 분자 및 생성물에 도입될 수 있다.
[표 A]
Figure pct00001
아미노산은 공통 측쇄의 특성에 따라 하기와 같이 그룹화될 수 있다:
(1) 소수성: 노르류신, Met, Ala, Val, Leu, Ile;
(2) 중성 친수성: Cys, Ser, Thr, Asn, Gln;
(3) 산성: Asp, Glu;
(4) 염기성: His, Lys, Arg;
(5) 쇄 배향에 영향을 주는 잔기: Gly, Pro;
(6) 방향족: Trp, Tyr, Phe.
비보존적 치환은 상기 부류 중 하나의 구성원을 다른 부류의 것으로 교환하는 것을 수반할 것이다.
용어 "아미노산 서열 변이체"는 모 항원 결합 분자(예컨대 인간화된 또는 인간 항체)의 하나 이상의 초가변부에 아미노산 치환이 존재하는 실질적인 변이체를 포함한다. 일반적으로, 추가의 연구를 위해 선택되는 생성 변이체는 모 항원 결합 분자에 비해 특정한 생물학적 특성(예컨대 증가된 친화도 또는 감소된 면역원성)의 개질(예컨대 향상)을 가질 것이고/거나 모 항원 결합 분자의 특정한 생물학적 특성이 실질적으로 유지될 것이다. 예시적인 치환 변이체는 친화도 성숙된 항체이고, 이는 통상적으로, 예컨대 파지 디스플레이-기반 친화도 성숙 기법, 예컨대 본원에 기재된 것을 사용하여 생성될 수 이다. 간략히는, 하나 이상의 HVR 잔기가 변이되고, 변이체 항원 결합 분자가 파지에 디스플레이되고, 특정한 생체활성(예컨대 결합 친화도)에 대해 선별된다. 특정 양태에서, 치환, 삽입 또는 삭제는 항원 결합 분자가 항원에 결합하는 능력이 실질적으로 감소되지 않는 한 하나 이상의 HVR내에서 일어날 수 있다. 예컨대, 결합 친화도를 실질적으로 감소시키지 않는 보존적 변경(예컨대 본원에 제시된 보존적 치환)은 HVR에서 제조될 수 있다. 돌연변이생성에 대해 표적화될 수 있는 항체의 잔기 또는 영역의 동정에 유용한 방법은 "알라닌 스캐닝 돌연변이생성(alanine scanning mutagenesis)"이고, 문헌[Cunningham and Wells (1989) Science, 244:1081-1085]에 기재되어 있다. 상기 방법에서, 잔기 또는 표적 잔기의 군(예컨대 하전된 잔기, 예컨대 Arg, Asp, His, Lys 및 Glu)이 동정되고 중성 또는 음으로 하전된 아미노산(예컨대 알라닌 또는 폴리알라닌)으로 대체되어 항체와 항원의 상호작용이 영향을 받는지 여부를 확인한다. 추가의 치환은 초기 치환에 대한 기능적 민감성을 나타내는 아미노산 위치에 도입될 수 있다. 다르게는 또는 추가적으로, 항원-항원 결합 분자가 복합체를 형성하여 항체와 항원간의 접촉점이 동정된다. 이러한 접촉 잔기 및 인접 잔기가 치환에 대한 후보로서 표적화되거나 제거될 수 있다. 변이체는 목적 특성을 갖는지 여부를 확인하기 위해 선별될 수 있다.
아미노산 서열 삽입은 하나의 잔기 내지 100개 이상의 잔기를 갖는 폴리펩티드 길이의 아미노- 및/또는 카복시-말단 융합, 및 단일 또는 다수의 아미노산 잔기의 서열내 삽입을 포함한다. 말단 융합의 예는 N-말단 메티오닐 잔기를 갖는 본 발명의 이중특이성 항원 결합 분자를 포함한다. 분자의 기타 삽입 변이체는 폴리펩티드에 대해 N-말단 또는 C-말단으로의 결합을 포함하고, 이는 이중특이성 항원 결합 분자의 혈청 반감기를 증가시킨다.
특정 양태에서, 본원에서 제시되는 이중특이성 항원 결합 분자는 항체가 당화되는 정도를 증가 또는 감소시키기 위해 변경된다. 분자의 당화 변이체는 하나 이상의 당화 부위가 생성되거나 제거될 수 있도록 통상적으로는 아미노산 서열을 변경함으로써 수득될 수 있다. 이중특이성 항원 결합 분자가 Fc 영역을 포함하는 경우, 이에 부착된 탄수화물이 변경될 수 있다. 전형적으로, 포유동물 세포에 의해 생성된 고유 항체는 일반적으로 Fc 영역의 CH2 도메인의 Asn297에 대한 N-연결에 의해 부착된 분지된 2안테나형(biantennary) 올리고당을 포함한다(예컨대 문헌[Wright et al. TIBTECH 15:26-32 (1997)] 참고). 2안테나형 올리고당 구조의 줄기(stem)에서, 올리고당은 다양한 탄수화물, 예컨대 만노스, N-아세틸 글루코사민(GlcNAc), 갈락토스 및 시알산, 및 GlcNAc에 부착된 푸코스를 포함할 수 있다. 일부 양태에서, 항원 결합 분자에서 올리고당의 변형은 특정한 향상된 특성을 갖는 변이체를 생성하기 위해 수행될 수 있다. 하나의 양상에서, 본 발명의 이중특이성 항원 결합 분자의 변이체 또는 항체는 Fc 영역에 (직접 또는 간접) 부착된 푸코스를 결여하는 탄수화물 구조를 갖도록 제시된다. 이러한 푸코실화 변이체는 향상된 ADCC 기능을 가질 수 있다(예컨대 US 2003/0157108(프레스타 엘.(Presta, L.)) 또는 US 2004/0093621(쿄와 하코 코교 컴퍼니 리미티드(Kyowa Hakko Kogyo Co., Ltd.)) 참고). 또 다른 양상에서, 본 발명의 이중 특이성 항원 결합 분자의 변이체 또는 항체는 단면화된(bisected) 올리고당(예컨대 Fc 영역에 부착된 2안테나형 올리고당이 GlcNAc에 의해 단면화됨)을 갖도록 제시된다. 이러한 변이체는 감소된 푸코실화 및/또는 향상된 ADCC 기능을 가질 수 있다(예컨대 WO 2003/011878(장-마리에트(Jean-Mairet) 등); US 6,602,684(우마나(Umana) 등); 및 US 2005/0123546(우마나 등) 참고). Fc 영역에 부착된 올리고당에서 하나 이상의 갈락토스를 갖는 변이체도 제시된다. 이러한 항체 변이체는 향상된 CDC 기능을 가질 수 있고, 예컨대 WO 1997/30087(파텔(Patel) 등); WO 1998/58964(라주, 에스(Raju, S.)); 및 WO 1999/22764(라주 에스)에 기재되어 있다.
특정 양상에서, 본 발명의 이중특이성 항원 결합 분자의 시스테인 변형된 변이체(예컨대 티오맙(thioMAb), 여기서 상기 분자의 하나 이상의 잔기는 시스테인 잔기로 치환됨)을 생성하는 것이 바람직할 수 있다. 특정 양상에서, 치환된 잔기는 분자의 접근가능한 위치에 나타난다. 이러한 잔기를 시스테인으로 치환함으로써, 반응성 티올 기가 항체의 접근가능한 부위에 자리잡을 수 있고 항체를 다른 잔기, 예컨대 약물 잔기 또는 연결자-약물 잔기에 접합시켜 면역접합체를 생성하는데 사용될 수 있다. 특정 양상에서, 임의의 하나 이상의 하기 잔기가 시스테인으로 치환될 수 있다: 경쇄의 V205(카밧 번호부여); 중쇄의 A118(EU 번호부여); 및 중쇄 Fc 영역의 S400(EU 번호부여). 시스테인 변형된 항원 결합 분자는 US 7,521,541에 기재된 바와 같이 생성될 수 있다.
특정 양상에서, 본원에 제시되는 이중특이성 항체는 당업계에 공지되어 있고 용이하게 이용가능한 추가의 비단백성 잔기를 갖도록 추가로 변형될 수 있다. 항체의 유도에 적합한 잔기는 비한정적으로 수용성 중합체를 포함한다. 수용성 중합체의 비한정적인 예는 폴리에틸렌 글리콜(PEG), 에틸렌 글리콜/프로필렌 글리콜의 공중합체, 카복시메틸셀룰로스, 덱스트란, 폴리비닐 알코올, 폴리비닐 피롤리돈, 폴리-1,3-다이옥솔란, 폴리-1,3,6-트라이옥산, 에틸렌/말레산 무수물 공중합체, 폴리아미노산(동종중합체 또는 랜덤 공중합체), 및 덱스트란 또는 폴리(n-비닐 피롤리돈)폴리에틸렌 글리콜, 폴리프로필렌 글리콜 동종중합체, 폴리프로필렌 옥사이드/에틸렌 옥사이드 공중합체, 폴리옥시에틸화 폴리올(예컨대 글리세롤), 폴리비닐 알코올 및 이의 혼합물을 포함한다. 폴리에틸렌 글리콜 프로피온알데히드는 이의 물에서의 안정성에 기인하여 제조에서 유리할 수 있다. 중합체는 임의의 분자량의 것일 수 있고, 분지되거나 비분지될 수 있다. 항체에 부착되는 중합체의 개수는 다를 수 있고, 하나 초과의 중합체가 부착되는 경우, 이는 동일하거나 상이한 분자일 수 있다. 일반적으로, 유도에 사용되는 중합체의 개수 및/또는 유형은 비한정적으로 향상되어야 할 항체의 특정 특성 또는 기능을 비롯하여 이중특이성 항체 유도체가 한정된 조건에서 사용될 지 여부 등에 대한 고찰을 기반으로 결정될 수 있다. 또 다른 양상에서, 방사선에 대한 노출에 의해 선택적으로 가열될 수 있는 항체의 접합체 및 비단백성 잔기가 제시된다. 하나의 양태에서, 비단백성 잔기는 탄소 나노튜브이다(문헌[Kam, N.W. et al., Proc. Natl. Acad. Sci. USA 102 (2005) 11600-11605]). 방사선은 임의의 파장의 것일 수 있고, 비한정적으로 정상 세포에 해를 주지 않되 비단백성 잔기를 항체-비단백 잔기에 인접한 세포는 살해하는 온도로 가열하는 파장을 포함할 수 있다.
또 다른 양상에서, 본원에 제시되는 이중특이성 항체의 면역접합체가 수득될 수 있다. "면역접합체"는 하나 이상의 이종 분자, 예컨대 비한정적으로 세포독성제에 접합된 항체이다.
용어 "핵산"은 단리된 핵산 분자 또는 구조물, 예컨대 메신저 RNA(mRNA), 바이러스로 유도된 RNA 또는 플라스미드 DNA(pDNA)를 지칭한다. 폴리뉴클레오티드는 통상적인 포스포다이에스터 결합 또는 비통상적인 결합(아미드 결합, 예컨대 펩티드 핵산(PNA)에서 발견됨)을 포함할 수 있다. 용어 "핵산 분자"는 폴리뉴클레오티드에 존재하는 임의의 하나 이상의 핵산 분절, 예컨대 DNA 또는 RNA 단편을 지칭한다.
단리된 핵산 분자 또는 폴리뉴클레오티드는 고유 환경으로부터 제거된 핵산 분자, DNA 또는 RNA이다. 예컨대, 벡터에 함유된 폴리펩티드를 암호화하는 재조합 폴리뉴클레오티드가 본 발명을 위해 단리된 것으로 간주된다. 단리된 폴리뉴클레오티드의 추가의 예는 이종 숙주 세포내에 유지된 재조합 폴리뉴클레오티드 또는 용액 중 (부분 또는 실질) 정제된 폴리뉴클레오티드를 포함한다. 단리된 폴리뉴클레오티드는 폴리뉴클레오티드 분자를 통상적으로 함유하는 세포에 함유된 폴리뉴클레오티드 분자를 의미하지만, 상기 폴리뉴클레오티드 분자는 자연 염색체 위치와는 상이한 염색체외 또는 염색체 위치에 존재한다. 단리된 RNA 분자는 본 발명의 체내 또는 시험관내 RNA 전사물, 및 양성 및 음성 가닥 형태, 및 이중가닥 형태를 포함한다. 본 발명에 따른 단리된 폴리뉴클레오티드 또는 핵산은 합성 제조된 이러한 분자를 추가로 포함한다. 또한, 폴리뉴클레오티드 또는 핵산은 조절 요소(regulatory element), 예컨대 프로모터, 리보솜 결합 부위 또는 전사 종결자이거나 이를 포함할 수 있다.
예컨대 본 발명의 참조 뉴클레오티드 서열과 95% 이상 일치하는 뉴클레오티드 서열을 갖는 핵산 또는 폴리뉴클레오티드는 폴리뉴클레오티드의 뉴클레오티드 서열이 참조 뉴클레오티드 서열의 매 100개 뉴클레오티드당 5개 이하의 점 돌연변이를 포함할 수 있음을 제외하고는 참조 서열과 동일함을 의미한다. 즉, 참조 뉴클레오티드 서열과 95% 이상 동일한 뉴클레오티드 서열을 갖는 폴리뉴클레오티드를 수득하기 위해, 참조 서열에서 5% 이하의 뉴클레오티드가 삭제되거나 또 다른 뉴클레오티드로 치환될 수 있거나, 참조 서열에서 총 뉴클레오티드의 5% 이하의 개수의 뉴클레오티드가 참조 서열에 삽입될 수 있다. 참조 서열의 이러한 변경은 참조 뉴클레오티드 서열의 5' 또는 3' 말단 위치나 상기 말단 위치간의 임의의 위치(참조 서열의 잔기 중에 개별적으로 개재된 것 또는 참조 서열내의 하나 이상의 연속적인 군)에서 일어날 수 있다. 실질적으로는, 임의의 특정 폴리뉴클레오티드 서열이 본 발명의 뉴클레오티드 서열과 적어도 80%, 85%, 90%, 95%, 96%, 97%, 98% 또는 99% 일치하는 지 여부는 기지의 컴퓨터 프로그램, 예컨대 폴리펩티에 대해 상기 논의한 것(예컨대 ALIGN-2)을 사용하여 통상적으로 확인될 수 있다.
용어 "발현 카세트(expression cassette)"는 표적 세포에서 특정 핵산의 전사를 허용하는 일련의 특정된 핵산 요소를 갖는 재조합 또는 합성으로 생성된 폴리뉴클레오티드를 지칭한다. 제조합 발현 카세트는 플라스미드, 염색체, 미토콘트리아 DNA, 플스티드 DNA, 바이러스 또는 핵산 단편에 혼입될 수 있다. 전형적으로, 발현 벡터의 제조합 발현 카세트 부분은 다른 서열들 중에서도 전사될 핵산 서열 및 프로모터를 포함한다. 특정 양태에서, 본 발명의 발현 카세트는 본 발명이 이중특이성 항원 결합 분자 및 이의 단편을 암호화하는 폴리뉴클레오티드를 포함한다.
용어 "벡터" 또는 "발현 벡터"는 "발현 구조물"과 동의어이고, 표적 세포에서 작동가능하게 회합되는 특정 유전자의 발현을 도입하고 유도하는데 사용되는 DNA 분자를 지칭한다. 상기 용어는 자가-복제성 핵산 구조로서의 벡터, 및 도입되는 숙주 세포의 게놈에 혼입되는 벡터를 포함한다. 본 발명의 발현 벡터는 발현 카세트를 포함한다. 발현 벡터는 다량의 안정한 mRNA의 전사를 가능하게 한다. 발현 벡터가 표적 세포내에 존재하게 되면, 유전자에 의해 암호화되는 리보핵산 분자 또는 단백질이 세포 전사 및/또는 번역 장치에 의해 생성된다. 하나의 양태에서, 본 발명의 발현 벡터는 본 발명의 이중특이성 항원 결합 분자 또는 이의 단편을 암호화하는 폴리뉴클레오티드 서열을 포함하는 발현 카세트를 포함한다.
용어 "숙주 세포", "숙주 세포계" 및 "숙주 세포 배양"은 상호교환가능하게 사용되고, 외인성 핵산이 도입되는 세포 및 상기 세포의 자손을 지칭한다. 숙주 세포는 "형질전환체" 및 "형질전환된 세포"를 포함하고, 이는 경로의 개수와 상관없이 1차 형질전환된 세포 및 이로부터 유도된 자손을 포함한다. 자손은 모세포와 핵산 함량이 동일할 필요는 없지만, 돌연변이를 포함할 수 있다. 고유 형질전환된 세포에서 선별되거나 선택된 동일한 기능 또는 생체활성을 갖는 돌연변이 자손이 여기에 포함된다. 숙주 세포는 본 발명의 이중특이성 항원 결합 분자를 생성하는데 사용될 수 있는 임의의 유형의 세포 체계이다. 숙주 세포는 배양된 세포, 예컨대 포유동물의 배양된 세포, 예컨대 CHO 세포, BHK 세포, NS0 세포, SP2/0 세포, YO 골수종 세포, P3X63 마우스 골수종 세포, PER 세포, PERC6 세포 또는 하이브리도마 세포, 효모 세포, 곤충 세포 및 식물 세포, 및 예컨대 형질전환 동물, 형질전환 식물 또는 배양된 식물이나 동물 조직에 포함된 세포도 포함한다.
제제의 "효과량"은 투여되는 세포 또는 조직에서 생리학적 변화를 야기하는데 필요한 양을 지칭한다.
제제의 "치료 효과량"은 목적 치료 또는 예방 결과를 성취하는데 필요한 투여량 및 기간에서의 효과량을 지칭한다. 제제의 치료 효과량은, 예컨대 질환의 유해 효과를 제거, 감소, 지연, 최소화 또는 예방한다.
"개체" 또는 "대상"은 포유동물이다. 포유동물은 비한정적으로 사육 동물(예컨대 소, 양, 고양이, 개 및 말), 영장류(예컨대 인간 및 비인간 영장류, 예컨대 원숭이), 토끼 및 설치류(예컨대 마우스 및 래트)를 포함한다. 특히, 개체 또는 대상은 인간이다.
용어 "약학 조성물"은 제제를 지칭하고, 이는 그 형태로 이에 함유된 활성 성분의 생체활성이 효과적이게 하고, 제형이 투여되는 대상에게 허용불가하게 독성인 추가의 성분을 함유하지 않다.
"약학적으로 허용되는 부형제"는 대상에게 비독성인 약학 조성물 중 활성 성분 이외의 성분을 지칭한다. 약학적으로 허용되는 부형제는 비한정적으로 완충제, 안정화제 또는 보존제를 포함한다.
용어 "패키지 삽입물"은 치료 제품의 시판 포장에 통상적으로 포함되는 지침서를 지칭하고, 상기 치료 제품의 사용에 관한 지시사항, 투여량, 투여법, 조합 치료법, 금지사항 및/또는 주의사항이 실려있다.
본원에 사용된 "치료(및 이의 문법적 변형, 예컨대 "치료하다" 또는 "치료하는")은 치료되는 개체의 자연적 과정을 변경하는 시도에 있어서 임상적 중재를 지칭하고, 예방을 위해 또는 임상 병리학의 과정 동안 수행될 수 있다. 치료의 바람직한 효과는 비한정적으로 질환의 발생 또는 재발의 방지, 증상의 경감, 질환의 임의의 직접적 또는 간접적 병리학적 결과의 축소, 질환 진행 속도의 감소, 병태의 개선 또는 완화, 및 관해 또는 향상된 예후를 포함한다. 일부 양태에서, 본 발명의 분자는 질환의 발달을 지연시키거나 질환의 진행을 둔화시키는데 사용된다.
본원에 사용된 용어 "암"은 증식성 질환, 예커대 림프종, 암종, 아세포종, 육종, 백혈병, 림프구성 백혈병, 폐암, 비소세포 폐암(NSCL), 기관지 폐포세포 폐암, 골암, 췌장암, 피부암, 두경부암, 피부 또는 안내 흑색 종, 자궁암, 난소암, 직장암, 항문암, 위암, 위암, 대장암(CRC), 췌장암, 유방암, 삼중 음성 유방암, 자궁암, 난관암종, 자궁내막암, 자궁경부암, 질암, 외음부암, 호지킨 병, 식도암, 소장암, 내분비계암, 갑상선암, 부갑상선암, 부신암, 연조직 육종, 요도암, 음경암, 전립선암, 방광암, 신장 또는 요관 암, 신장세포암종, 신장 골반암종, 중피종, 간세포암, 담도암, 중추신경계(CNS)의 신생물, 척추 축 종양, 뇌간 신경교종, 교모세포종, 성상세포종, 신경초종, 뇌실막종, 수질 모세포종, 수막종, 편평 상피세포 암종, 뇌하수체 선종 및 흑색종 육종, B 세포암(림프종), 만성 림프 구성 백혈병(CLL), 급성 림프모구성 백혈병(ALL), 모발세포 백혈병, 만성 골수 아 구성 백혈병, 및 상기 암 중 임의의 것의 불응성인 형태, 또는 상기 암들 중 하나 이상의 조합을 지칭한다.
본 발명의 이중특이성 항원 결합 분자
본 발명은 특히 유리한 특성, 예컨대 생산성, 안정성, 결합 친화도, 생체활성, 표적화 효율 및 감소된 독성을 갖는 신규한 이중특이성 항체를 제시한다. 신규한 이중특이성 항체는 제1 표적에 특이적으로 결합가능한 2개의 항원 결합 도메인 및 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인을 포함하는 2개의 융합 폴리펩티드로 이루어진다. 놀랍게도, 상기 2개의 융합 폴리펩티드는 3개의 항원 결합 도메인이 정확하게 조립되고 이중특이성 결합이 완전히 기능하도록 변형된다.
임상 적용을 위해 개발될 분자의 경우, 기능상 활성인 분자의 응집체를 피해야하며, 이는 항원 결합 분자를 형성하는 상이한 융합 폴리펩티드의 조립의 순도 및 안정성이 매우 중요하다는 것을 의미한다. 중요하게는, 본 발명의 이중특이성 항체에서, 3개의 항원 결합 도메인 모두가 3개의 항원 결합 도메인의 정확한 조립을 가능하게 하도록 융합된다. 그리고 3개의 항원 결합 도메인은 모든 항원 결합 도메인이 그들의 각각의 표적에 결합할 수 있도록 위치된다. 본 발명의 새로운 이중특이성 항원 결합 분자는 또한 2개의 융합 폴리펩티드만으로 구성되고, 어떠한 경쇄도 포함하지 않는다. 따라서, 중쇄와 경쇄 사이의 올바른 페어링 문제를 피할 수있다. 구조물이 합리적으로 우수한 역가로 발현되고 원하는 제품의 바람직한 비를 생성하는 것 또한 중요하다. 이량체화를 위한 스페이서 도메인을 포함하는 항체-유사 구조는 다른 단백질과 비교하여 안정적이고, 이들의 발현도 상이한 세포계를 사용하여 매우 강력하다.
본 발명의 신규한 이중특이성 항원 결합 분자는 2+1 컨터체로 지칭된다.
따라서, 2+1 컨터체는 2개의 융합 폴리펩티드로 이루어지고 제1 표적에 특이적으로 결합가능한 2개의 항원 결합 도메인 및 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인을 포함하는 이중특이성 항체로서,
(a) 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분, 스페이서 도메인, 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분을 포함하는 제1 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제1 융합 폴리펩티드; 및
(b) 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분, 스페이서 도메인, 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분을 포함하는 제2 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제2 융합 폴리펩티드
를 포함하고,
상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 제2 표적에 특이적으로 결합가능한 항원 결합 도메인을 형성하고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 및 제2 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 고리형 융합 폴리펩티드를 형성하고,
상기 제1 융합 폴리펩티드의 스페이서 도메인 및 상기 제2 융합 폴리펩티드의 스페이서 도메인이 다이설파이드 결합에 의해 서로 공유결합으로 회합되고 상기 제1 융합 폴리펩티드와 상기 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함하는,
이중특이성 항체이다.
하나의 양상에서, 제1 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되고; 제2 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 본원에서 상기 정의된 이중특이성 항체가 제시된다.
또 다른 양상에서, 제1 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되고; 제2 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 본원에서 상기 정의된 이중특이성 항체가 제시된다.
따라서, 본원에 상기 정의된 이중특이성 항체에서, 고유 항체 도메인은 가요성 펩티드 연결자와 융합된다. 이러한 연결자는 컨터체 분자내의 정확한 도메인 회합 및 항체의 적절한 접힘을 가능하게 한다. 이러한 새로운 쇄의 위상기하는 종래의 IgG1 형식과는 상이한 Fab 팔 및 Fc 부분의 공간적 배향을 야기한다. 컨터체의 항원 결합 부위의 평행 배향에 기인하여, 컨터체는 작용성 기작에 매우 적합한 항체 형식이다.
하나의 양상에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분 또는 제2 부분을 연결하는 제3 펩티드 연결자가 15개 이상의 아미노산을 포함하는, 본원에서 상기 정의된 항체가 제시된다. 하나의 양상에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분을 연결하는 제3 펩티드 연결자와 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분을 연결하는 제3 펩티드 연결자는 동일하다. 하나의 양상에서, 제3 펩티드 연결자는 15 내지 25개의 아미노산을 포함한다. 하나의 특정 양상에서, 제3 펩티드 연결자는 서열번호 83 또는 서열번호 84의 아미노산 서열을 포함한다. 보다 특히, 제3 펩티드 연결자는 서열번호 84의 아미노산 서열을 포함한다. 추가의 양상에서, 제3 펩티드 (융합 폴리펩티드 둘다에서) 연결자는 서열번호 83 또는 서열번호 84의 아미노산 서열을 포함하고, 제1 및 제2 펩티드 연결자는 서열번호 78의 아미노산 서열을 포함한다.
하나의 양상에서, 본 발명은 제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하고; 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하거나, 제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하고; 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하는, 본원에서 상기 정의된 이중특이성 항체를 제시한다.
하나의 양상에서, 본 발명은 제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하고; 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하거나, 제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하고; 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하는, 본원에서 상기 정의된 이중특이성 항체를 제시한다. 하나의 특정 양상에서, 항원 결합 도메인의 제1 부분은 항체 중쇄 Fab 단편이고; 항원 결합 도메인의 제2 부분은 항체 경쇄 Fab 단편이거나, 항원 결합 도메인의 제2 부분은 항체 중쇄 Fab 단편이고; 항원 결합 도메인의 제1 부분은 항체 경쇄 Fab 단편이다. 하나의 양상에서, 항원 결합 도메인의 제1 부분 및 항원 결합 도메인의 제2 부분은 다이설파이드 결합에 의해 서로 공유결합으로 회합된다.
다른 양상에서, 2개의 융합 폴리펩티드로 이루어지고 제1 표적에 특이적으로 결합가능한 2개의 항원 결합 도메인 및 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인을 포함하는 이중특이성 항체로서,
(a) 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분, 스페이서 도메인, 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분을 포함하는 제1 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제1 융합 폴리펩티드;
(b) 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분, 스페이서 도메인, 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분을 포함하는 제2 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제2 융합 폴리펩티드; 및
(c) 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분을 포함하는 경쇄
를 포함하고,
상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 제2 표적에 특이적으로 결합가능한 항원 결합 도메인을 형성하고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 및 제2 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 고리형 융합 폴리펩티드를 형성하고,
상기 제1 융합 폴리펩티드의 스페이서 도메인 및 상기 제2 융합 폴리펩티드의 스페이서 도메인이 다이설파이드 결합에 의해 서로 공유결합으로 회합되고 상기 제1 융합 폴리펩티드와 상기 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함하는,
이중특이성 항체가 제시된다.
일부 양상에서, 항원 결합 도메인의 제1 부분은 항체 중쇄 Fab 단편이고; 항원 결합 도메인의 제2 부분은 항체 경쇄 Fab 단편이거나, 항원 결합 도메인의 제2 부분은 항체 중쇄 Fab 단편이고; 항원 결합 도메인의 제1 부분은 항체 경쇄 Fab 단편이다. 하나의 양상에서, 항원 결합 도메인의 제1 부분 및 항원 결합 도메인의 제1 부분은 다이설파이드 결합에 의해 서로 공유결합으로 회합된다.
하나의 양상에서, 제1 융합 폴리펩티드 및 제2 융합 폴리펩티드 둘다에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 항체 중쇄 Fab 단편이고; 제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 항체 경쇄 Fab 단편인, 본원에서 상기 정의된 이중특이성 항체가 제시된다.
항원 결합 도메인이 Fab 단편인 경우, Fab는 통상적인 Fab, 교차 Fab 또는 듀타Fab(DutaFab)일 수 있다.
통상적인 Fab의 경우, 항원 결합 도메인의 제1 부분은 항체 중쇄 가변 도메인(VH), 및 제1 항체 중쇄 불변 도메인(CH1)의 하나 이상의 N-말단 단편(또는 완전한 CH1)을 포함하고, 항원 결합 도메인의 제2 부분 각각은 항체 경쇄 가변 도메인(VL) 및, 및 항체 경쇄 불변 도메인(CL 또는 C카파)의 하나 이상의 N-단편 말단(또는 완전한 CL 또는 C카파)를 포함한다. 상기 도메인의 순서는 이의 회합 및 (기능) 항원 결합 도메인의 형성이 가능한 한(즉 방지되지 않는 한) 임의적일 수 있다. 하나의 양상에서, 항원 결합 도메인의 하나의 부분은 N-말단에서 C-말단 방향으로 VH-CH1을 포함하고, 항원 결합 도메인의 또 다른 부분은 N-말단에서 C-말단 방향으로 VL-CL(C카파)을 포함한다.
교차 Fab의 경우, 항원 결합 도메인의 부분 둘다는 각각 항체 가변 도메인, 및 항체 불변 도메인의 하나 이상의 N-말단 단편(또는 완전한 항체 불변 도메인)을 포함하고, 이에 의해 가변 도메인과 불변 도메인의 짝이 서로 자연히 회합되고, 중쇄 도메인과 경쇄 도메인의 도메인 교차/교환에 의해 수득된다. 이는 VH과 VL의 교환 또는 CH1과 CL의 교환일 수 있다. 상기 도메인의 순서는 (기능) 항원 결합 도메인의 형성이 가능한 한(즉 방지되지 않는 한) 임의적일 수 있다. 하나의 양상에서, 항원 결합 도메인의 제1 부분은 N-말단에서 C-말단 방향으로 VL-CH1을 포함하고, 항원 결합 도메인의 제2 부분은 N-말단에서 C-말단 방향으로 VH-CL(C카파)을 포함한다. 또 다른 양상에서, 항원 결합 도메인의 제1 부분은 N-말단에서 C-말단 방향으로 VH-CL을 포함하고, 항원 결합 도메인의 제2 부분은 N-말단에서 C-말단 방향으로 VL-CH1을 포함한다.
듀타Fab의 경우, 항원 결합 도메인의 제1 부분은 항체 중쇄 가변 도메인(VH), 및 제1 항체 중쇄 가변 도메인(CH1)의 하나 이상의 N-말단 단편(또는 완전한 CH1)을 포함하고, 항원 결합 도메인 각각은 경쇄 가변 도메인(VL), 및 항체 경쇄 불변 도메인(CL)의 N-말단 단편(또는 완전한 CL)을 포함하되, 상기 항원 결합 도메인은 중쇄 가변 도메인(VH)과 경쇄 가변 도메인(VL)의 상보적인 짝으로 2개의 비중첩 파라토프를 포함하고, 상기 제1 파라토프는 VL 도메인의 CDR1 및 CDR3, 및 VH 도메인의 CDR2로부터의 잔기를 포함하고, 제2 파라토프는 VH 도메인의 CDR1 및 CDR3, 및 VL 도메인의 CDR2로부터의 잔기를 포함한다.
따라서, 하나의 양상에서, 항원 결합 도메인은 중쇄 Fab 항체(VH-CH1)이고 항원 결합 도메인의 제2 부분은 항체 경쇄 Fab 단편(VL-C카파)이다. 또 다른 양상에서, 항원 결합 도메인의 제1 부분은 항체 경쇄 Fab 단편이고, 항원 결합 도메인의 제2 부분은 항체 중쇄 Fab 단편이다. 또 다른 양상에서, 항원 결합 도메인의 제1 부분은 VH-C카파를 포함하는 항체 교차 Fab 단편이고, 항원 결합 도메인의 제2 부분은 VL-CH1을 포함하는 항체 교차 FAb 단편이다. 추가의 양상에서, 항원 결합 도메인의 제1 부분은 VL-CH1을 포함하는 항체 교체 Fab 단편이고, 항원 결합 도메인의 제2 부분은 VH-C카파를 포함하는 Fab 단편이다.
특정 양상에서, 본 발명은 제2 표적에 특이적으로 결합가능한 항원 결합 도메인이 교차 Fab이되 제1 표적에 특이적으로 결합가능한 항원 결합 도메인 둘다가 통상적인 Fab인, 이중특이성 항체가 제시된다.
또 다른 양상에서, 본 발명은 제2 표적에 특이적으로 결합가능한 항원 결합 도메인이 통상적인 Fab이되, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인 둘다가 교차 Fab인, 이중특이성 항체가 제시된다.
전술한 바와 같이, 이중특이성 항체는 둘다 스페이서 도메인을 포함하는 제1 및 제2 융합 폴리펩티드로 이루어지되, 상기 제1 융합 폴리펩티드의 스페이서 도메인 및 제2 융합 폴리펩티드는 다이설파이드 결합에 의해 공유결합으로 회합되고 제1 및 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 스페이서 도메인은 25개 이상의 아미노산을 포함한다.
본 발명의 하나의 양상에서, 스페이서 도메인은 항체 경첩부 또는 이의 (C-말단) 단편, 및 항체 CH2 도메인 또는 이의 (N-말단) 단편을 포함한다. 또 다른 양상에서, 스페이서 도메인은 항체 경첩부 또는 이의 단편, 항체 CH2 도메인, 및 항체 CH3 도메인 또는 이의 단편을 포함한다. 하나의 양상에서, 본원에 기재된 융합 폴리펩티드의 스페이서 도메인은 항체 Fc 도메인, 특히 IgG1, IgG2 또는 IgG4 아강, 보다 특히 IgG1 아강이다.
하나의 양상에서, 스페이서 도메인은 서열번호 103, 서열번호 104, 서열번호 105, 서열번호 106 및 서열번호 107로 이루어진 군으로부터 선택된 아미노산 서열을 갖는 Fc 도메인, 또는 이의 95% 상동 변이체를 포함한다.
또한, 제1 융합 폴리펩티드의 스페이서 도메인 및 제2 융합 폴리펩티드의 스페이서 도메인은 제1 및 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 특정 양상에서, 놉 인투 홀 방법에 따라, 제1 융합 폴리펩티드의 스페이서 도메인은 홀을 포함하고, 제2 융합 폴리펩티드의 스페이서 도메인은 놉을 포함한다. 추가의 양상에서, 본 발명은 스페이서 도메인이 항체 경첩부 또는 이의 단편, 및 IgG1 도메인을 포함하는, 이중특이성 항체를 포함한다. 특히, IgG1 Fc 도메인은 Fc 수용체, 특히 Fcγ 수용체에 대한 결합을 감소시키는 하나 이상의 아미노산 치환을 포함한다. 특정 양상에서, IgG1 Fc 도메인은 L234A 및 L235A의 아미노산 치환을 포함한다. 또 다른 양상에서, IgG1 Fc 도메인은 돌연변이 P329G를 포함한다. 보다 특히, IgG1 Fc 도메인은 (카밧 EU 색인에 따른 번호부여로) L234A, L235A 및 P329G의 아미노산 치환을 포함한다.
또 다른 양상에서, 본원에 보도된 Fc 도메인은 IgG1 또는 IgG2 아강이고, 돌연변이 PVA234(카밧 EU 색인에 따른 번호부여), GLPSS331 및/또는 L234A/L235A/P329G를 포함한다. 추가의 양상에서, 본원에 보고된 Fc 도메인은 IgG4 아강이고 돌연변이 L235E를 포함한다. 하나의 양상에서, Fc 도메인은 돌연변이 S228P를 추가로 포함한다. 하나의 양상에서, IgG4 아강의 Fc 도메인은 돌연변이 P329G를 포함한다.
하나의 양상에서, 본원에 보고된 Fc 도메인은 IgG4 아강이고, 돌연변이 S228P/L235E/P329G(모두 카밧 EU 색인에 따른 번호부여)를 포함한다.
일부 양상에서, 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인이 종양 관련 항원(TAA)에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 종양 관련 항원은 섬유아세포 활성화 단백질(FAP)이다. 하나의 양상에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인이 FAP에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다.
이종이량체화를 촉진하는 Fc도메인 변형
하나의 양상에서, 본 발명의 이중특이성 항체는 본원에서 전술 및 후술한 제1 융합 폴리펩티드 및 본원에서 전술 및 후술한 제2 융합 폴리펩티드를 포함할 수 있되, 여기서 제1 및 제2 융합 폴리펩티드는 제1 및 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함한다. 전형적으로, 상기 변형은 Fc 도메인에 도입된다. 2개의 구조적으로 상이한 융합 폴리펩티드의 재조합 공동발현은 및 후속의 이량체화는 2개의 폴리펩티드의 몇몇 가능한 조합을 야기한다. 재조합 생성물에서 이중특이성 항체의 수율 및 순도를 향상시키기 위해, 따라서, 본 발명의 이중특이성 항원 결합 분자의 Fc 도메인에 목적 폴리펩티드의 회합을 촉진하는 변형을 도입하는 것이 유리할 것이다.
인간 Fc 도메인의 2개의 아단위의 가장 광범위한 단백질-단백질 상호작용 부위는 Fc 도메인의 CH3 도메인이다. 따라서, 특히, 상기 변형은 Fc 도메인의 CH3 도메인이다.
특정 양상에서, 전술한 변형은 이른바 놉 인투 홀 변형이고, 이는 Fc 도메인의 2개의 아단위 중 하나에서 놉 변형 및 2개의 아단위 중 다른 하나에서 홀 변형을 포함한다. 따라서, 특정 양상에서, 본 발명은 IgG 분자를 포함하고, 여기서 제1 중쇄의 Fc 부분이 제1 이량체화 모듈을 포함하고 제2 중쇄의 Fc 부분이 제2 이량체화 모듈을 포함하여 IgG 분자의 2개의 중쇄를 가능하게 하고, 놉 인투 홀 기술에 따라, 제1 이량체화 모듈이 놉을 포함하고 제2 이량체화 모듈이 홀을 포함하는, 본원에서 전술한 이중특이성 항원 결합 분자에 관한 것이다.
놉 인투 홀 기술은 기술은, 예컨대 US 5,731,168; US 7,695,936; 문헌[Ridgway et al., Prot Eng 9, 617-621 (1996)] 및 문헌[Carter, J Immunol Meth 248, 7-15 (2001)]에 기재되어 있다. 일반적으로, 상기 방법은 제1 폴리펩티드의 계면에 돌출부(놉) 및 제2 폴리펩티드의 계면에 상응하는 공동(홀)을 도입함을 수반하여, 상기 돌출부가 상기 공동에 자리잡음으로써 이종이량체 형성 및 후부 동종 이량체 형성이 촉진된다. 돌출부는 제1 폴리펩티드의 계면으로부터의 작은 아미노산 측쇄를 더 큰 측쇄(예컨대 티로신 또는 트립토판)으로 대체함으로써 구축된다. 돌출부와 동일하거나 유사한 크기의 상보적 공동은 제2 폴리펩티드의 계면에서 큰 아미노산 측쇄를 더 작은 것(예컨대 알라닌 또는 트레오닌)으로 대체함으로써 생성된다.
본원에 보고된 제1 및 제2 융합 폴리펩티드에서 CH3 도메인은 놉 인투 홀 기술(예컨대 WO 96/027011, 문헌[Ridgway, J.B., et al., Protein Eng. 9 (1996) 617-621]; 및 문헌[Merchant, A.M., et al., Nat. Biotechnol. 16 (1998) 677-681]에 몇몇 예로 상세히 기제되어 있음)에 의해 변경될 수 있다. 상기 방법에서, 2개의 CH3 도메인의 계면은 상기 2개의 CH3 도메인을 함유하는 중쇄 둘다의 이종이량체화를 증가시키도록 변경된다. (2개의 중쇄의) 2개의 CH3 도메인 각각은 놉이고 다른 하나는 홀일 수 있다. 다이설파이드 가교의 도입은 이종이량체를 더욱 안정화시키고(문헌[Merchant, A.M., et al., Nature Biotech. 16 (1998) 677-681]; 및 문헌[Atwell, S., et al., J. Mol. Biol. 270 (1997) 26-35]), 수율을 증가시킨다.
따라서, 특정 양상에서, 본 발명의 이중특이성 항원 결합 분자의 Fc 도메인의 제1 아단위의 CH3 도메인에서, 아미노산 잔기는 더 큰 측쇄 부피를 갖는 아미노산 잔기로 대체됨으로써, 제2 아단위의 CH3 도메인내에서 공동에 위치가능한 제1 아단위의 CH3 도메인내의 돌출부를 생성하고, Fc 도메인의 제2 아단위의 CH3 도메인에서, 아미노산 잔기는 더 작은 측쇄 부피를 갖는 아미노산 잔기로 대체됨으로써, 제1 아단위의 CH3 도매인내에서 돌출부에 위치가능한 제2 아단위의 CH3 도메인내의 공동을 생성한다.
특정 양사에서, Fc 도메인의 제1 아단위의 CH3 도메인(놉 쇄)에서, 위치 366에서의 트레오닌 잔기는 트립토판 잔기(T366W)로 대체되고, Fc 도메인의 제2 아단위의 CH3 도메인에서, 위치 407에서의 티로신 잔기는 발린 잔기(Y407V)로 대체된다. 보다 특히, Fc 도메인의 제2 아단위(홀 쇄)에서, 추가적으로, 위치 366에서의 트레오닌 잔기는 세린 잔기(T366S)로 대체되고, 위치 368에서의 류신 잔기는 알라닌 잔기(L368A)로 대체된다. 보다 특히, Fc 도메인의 제1 아단위에서, 추가적으로, 위치 354에서의 세린 잔기는 시스테인 잔기(S354C)로 대체되고, Fc 도메인의 제2 아단위에서, 추가적으로, 위치 349에서의 티로신 잔기는 시스테인 잔기(Y349C)로 대체된다. 상기 2개의 시스테인 잔기의 도입은 Fc 도메인의 2개의 아단위간의 다이설파이드 가교의 형성을 야기한다. 다이설파이드 가교는 이량체를 더욱 안정화시킨다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)]).
또한, EP 1870459 A1에 기재되어 있는 놉 인투 홀 기술이 대체로 또는 추가적으로 사용될 수 있다. 하나의 양상에서, 본원에 보고된 다고리 융합 폴리펩티드는 놉 쇄의 CH3 도메인에서 R409D(카밧 EU 색인에 따른 번호부여) 및 K370E 돌연변이, 및 홀 쇄의 CH3 도메인에서 D399K 및 E357K 돌연변이를 포함한다.
추가의 양상에서, 이중특이성 항원 결합 분자는 2개의 CH3 도메인 중 하나에서 Y349C(카밧 EU 색인에 따른 번호부여) 및 T366W 돌연변이, 및 2개의 CH3 도메인 중 다른 하나에서 S354C, T366S, L368A 및 Y407V 돌연변이를 포함하거나, 2개의 CH3 도메인 중 하나에서 Y349C 및 T366W 돌연변이, 및 2개의 CH3 도메인 중 다른 하나에서 S354C, T366S, L368A 및 Y407V 를 포함하고, 추가적으로, 놉 쇄의 CH3 도메인의 R409D 및 K370E 돌연변이 및 홀 쇄의 CH3 도메인에서 D399K 및 E357K 돌연변이를 포함한다.
다른 양상에서, Fc 도메인의 제1 및 제2 아단위의 회합 촉진 변형은 정전기 조향(electrostatic steering) 효과를 매개하는 변형을 포함한다(예컨대 WO 2009/089004에 기재되어 있음). 일반적으로, 상기 방법은 하전된 아미노산 잔기를 갖는 2개의 Fc 도메인의 계면에서 하나 이상의 아미노산 잔기의 대체를 수반하여 동종이량체 형성이 정전기적으로 비선호되지만 이종이량체화는 정전기적으로 선호되게 된다.
놉 인투 홀 기술 이외에도, 이종이량체화를 강화하는 중쇄의 CH3 도메인의 변형을 위한 다른 기법들이 당업계에 공지되어 있다. 본원에서, 이러한 기술(특히 WO 96/27011, WO 98/050431, EP 1870459, WO 2007/110205, WO 2007/147901, WO 2010/129304, WO 2011/90754, WO 2011/143545, WO 2012/058768, WO 2013/157954 및 WO 2013/096291에 기재되어 있음)은 본원에 기재된 이중특이성 항원 결합 분자와의 조합으로 놉 인투 홀 기술에 대한 대안으로서 고려된다.
하나의 양상에서, 제1 및 제2 중쇄간 CH3/CH3-도메인-계면에서 특정 아미노산 위치에서 반대 전하로 하전된 아미노산이 목적 폴리펩티드의 회합을 더욱 촉진하도록 도입된다. 따라서, 본 양상은 본원에 개시된 이중특이성 항원 결합 분자에 관한 것이되, 항체의 제1 중쇄의 CH3 도메인 및 제2 중쇄의 CH3 도메인의 3차 구조에서, 계면은 각각의 CH3 도메인간에 위치하고, 제1 중쇄의 CH3 도메인 및 제2 중쇄의 CH3 도메인의 각각의 아미노산 서열은 고리 융합 폴리펩티드의 3차 구조에서 전술한 계면내에 위치하는 아미노산의 집합을 각각 포함하고, 하나의 중쇄의 CH3 도메인의 계면에 위치하는 아미노산의 집합으로부터 제1 아미노산은 양으로 하전된 아미노산으로 치환되고, 다른 하나의 중쇄의 CH3 도메인의 계면에 위치하는 아미노산의 집합으로부터 제2 아미노산은 음으로 하전된 아미노산으로 치환된다. 이러한 양상에 따른 이중특이성 항원 결합 분자는 "CH3(+/-) 변형된 TNF 과 리간드 삼량체-함유 항원 결합 분자"로도 지칭된다(여기서 약어 "+/-"는 각각의 CH3 도메인에 도입된 반대로 하전된 아미노산을 나타냄). 본원에 보고된 전술한 CH3(+/-) 변형된 이중특이성 항원 결합 분자의 하나의 양상에서 ,양으로 하전된 아미노산은 K, R 및 H로부터 선택되고, 음으로 하전된 아미노산은 E 및 D로부터 선택된다. 또 다른 양상에서, 본원에 보고된 전술한 CH3(+/-) 변형된 이중특이성 항원 결합 분자에서, 양으로 하전된 아미노산은 K 및 R로부터 선택되고, 음으로 하전된 아미노산은 E 및 D로부터 선택된다. 추가의 양상에서, 본원에 보고된 전술한 CH3(+/-) 변형된 이중특이성 항원 결합 분자에서, 양으로 하전된 아미노산은 K이고, 음으로 하전된 아미노산은 E이다. 하나의 양상에서, 본원에 보고된 전술한 CH3(+/-) 변형된 이중특이성 항원 결합 분자에서, 하나의 중쇄의 CH3 도메인에서, 위치 409에서의 아미노산 R은 D로 치환되고 아미노산 K는 E로 치환되고, 다른 하나의 중쇄의 CH3 도메인에서, 위치 399에서의 아미노산 D는 K로 치환되고 위치 367에서의 아미노산은 K로 치환된다(카밧 EU 색인에 따른 번호부여).
본 발명의 추가의 양상에서, IgG1 Fc 도메인은 Fc 수용체, 측히 Fcγ 수용체에 대한 결합을 감소시키는 하나 이상의 아미노산 치환을 포함한다.
Fc 수용체 결합 및/또는 효과기 기능을 감소시키는 Fc 도메인 변형
본 발명의 이중특이성 항체는 면역글로불린 분자의 중쇄 도메인을 스페이서 도메인으로서 포함할 수 있다. 예컨대, 면역글로불린 G(IgG) 분자의 Fc 도메인은 이량체이고, 이의 각각의 아단위는 CH2 및 CH3 중쇄 불변 도메인을 포함한다. Fc 도메인의 2개의 아단위는 서로 안정한 회합이 가능하다. Fc 영역은 표적 조직에서 우수한 축적에 기여하는 긴 혈청 반감기 및 바람직한 조직-혈액 분포 비를 비롯한 본 발명의 바람직한 약동학적 특성을 부여한다. 그러나, 동시에, 본 발명의 이중특이성 항체가 바람직한 항원-보유 세포에 대한 표적화가 아닌 바람직하지 않은 표적화를 야기할 수 있다. 따라서, 특정 양태에서, 본 발명의 이중특이성 항체의 Fc 영역은 고유 IgG 영역, 특히 IgG1 Fc 영역 또는 IgG4 Fc 영역에 비해 Fc 수용체에 대한 감소된 결합 친화도 및/또는 감소된 효과기 기능을 나타낸다. 보다 특히, Fc 영역은 IgG1 Fc 영역이다.
이러한 하나의 양상에서, Fc 영역(또는 상기 Fc 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자)은 고유 IgG1 Fc 영역(또는 고유 IgG1 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자)에 대비 Fc 수용체에 대해 50% 미만, 바람직하게는 20% 미만, 보다 바람직하게는 10% 미만, 가장 바람직하게는 5% 미만의 결합 친화도 및/또는 고유 IgG1 Fc 영역(또는 고유 IgG1 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자)에 비해 50% 미만, 바람직하게는 20% 미만, 보다 바람직하게는 10% 미만, 가장 바람직하게는 5% 미만의 효과기 기능을 나타낸다. 하나의 양상에서, Fc 영역(또는 상기 Fc 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자)은 Fc 수용체에 실질적으로 결합하지 않고/거나 효과기 기능을 유도하지 않는다. 특정 양태에서, Fc 수용체는 Fcγ 수용체이다. 하나의 양상에서, Fc 수용체는 인간 Fc 수용체이다. 하나의 양태에서, Fc 수용체는 활성화 Fc 수용체이다. 특정 양상에서, Fc 수용체는 활성화 인간 Fcγ 수용체, 보다 구체적으로는 인간 FcγRIIIa, FcγRI 또는 FcγRIIa, 가장 구체적으로는 인간 FcγRIIa이다. 하나의 양상에서, Fc 수용체는 억제성 Fc 수용체이다. 구체적 양상에서, Fc 수용체는 억제성 인간 Fcγ 수용체, 보다 구체적으로는 인간 FcγRIIB 수용체이다. 하나의 양상에서 효과기 기능은 CDC, ADCC, ADCP 및 시토카인 분비 중 하나 이상이다. 특정 양상에서, 효과기 기능은 ADCC이다. 하나의 양상에서, Fc 영역 도메인은 고유 IgG1 영역에 비해 신생아 Fc 수용체(FcRn)에 실질적으로 더 유사한 결합 친화도를 나타낸다. FcRn에 대한 실질적으로 유사한 결합은 Fc 영역(또는 상기 Fc 영역을 포함하는 이중특이성 항원 결합 분자)이 FcRn에 대해 고유 IgG1 Fc 영역(또는 고유 IgG1 Fc 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자)의 약 70% 초과, 특히 약 80% 초과, 보다 특히 약 90% 초과의 결합 친화도를 나타낼 때 성취된다.
특정 양상에서, Fc 영역은 미변형된 Fc 영역에 비해 Fc 수용체에 대한 감소된 결합 친화도 및/또는 감소된 효과기 기능을 갖도록 변형된다. 특정 양상에서, 본 발명의 이중특이성 항원 결합 분자는 Fc 수용체에 대한 Fc 영역의 결합 친화도 및/또는 효과기 기능을 감소시키는 하나 이상의 아미노산 돌연변이를 포함한다. 전형적으로, 동일한 하나 이상의 아미노산 돌연변이가 Fc 영역의 2개의 아단위에 각각 존재한다. 또 다른 양상에서, 아미노산 돌연변이는 Fc 수용체에 대한 Fc 영역의 결합 친화도를 2배 이상, 5배 이상 또는 10배 이상 감소시킨다. 하나의 양상에서, 변형된 Fc 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자는 미변형된 Fc 영역을 포함하는 본 발명의 Fc 수용체에 대해 이중특이성 항체에 대비 20% 미만, 특히 10% 미만, 보다 특히 5% 미만의 결합 친화도를 나타낸다. 특정 양상에서, Fc 수용체는 Fcγ 수용체이다. 다른 양상에서, Fc 수용체는 인간 Fc 수용체이다. 하나의 양상에서, Fc 수용체는 억제성 Fc 수용체이다. 구체적 양상에서, Fc 수용체는 억제성 인간 Fcγ 수용체, 보다 구체적으로는 인간 FcγRIIB이다. 일부 양상에서, Fc 수용체는 활성화 Fc 수용체이다. 특정 양상에서, Fc 수용체는 활성화 인간 Fcγ 수용체, 보다 구체적으로는 인간 FcγRIIIa, FcγRI 또는 FcγRIIa, 가장 구체적으로는 인간 FcγRIIIa이다. 바람직하게는, 각각의 상기 수용체에 대한 결합이 감소된다. 일부 양상에서, 상보적 성분에 대한 결합 친화도, 구체적으로는 C1q에 대한 결합 친화도도 감소한다. 하나의 양상에서, 신생아 Fc 수용체(FcRn)에 대한 결합 친화도는 감소하지 않는다. FcRn에 대한 실질적으로 유사한 결합, 즉 상기 수용체에 대한 Fc 영역의 결합 친화도의 보존은 Fc 영역(또는 상기 Fc 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자)이 FcRn에 대해 미변형된 형태의 Fc 영역(또는 상기 미변형된 형태의 Fc 영역을 포함하는 본 발명의 이중특이성 항원 결합 분자) 대비 약 70% 초과의 결합 친화도를 나타낼 때 성취된다. Fc 영역 또는 상기 Fc 영역을 포함하는 본 발명의 항원 결합 분자는 약 80% 초과, 심지어 약 90% 초과의 친화도를 나타낼 수 있다. 특정 양태에서, 본 발명의 이중특이성 항원 결합 분자의 Fc 영역은 미변형된 Fc 영역에 비해 감소된 효과기 기능을 갖도록 변형된다. 감소된 효과기 기능은 비한정적으로 하기 중 하나 이상을 포함할 수 있다: 감소된 보체 의존적 세포독성(CDC), 감소된 항체 의존적 세포 매개된 세포독성(ADCC), 감소된 항체 의존적 식세포작용(ADCP), 감소된 시토카인 분비, 항원 제시 세포에 의한 면역 복합체 매개된 항원 함입의 감소, NK 세포에 대한 감소된 결합, 대식세포에 대한 감소된 결합, 단핵구에 대한 감소된 결합, 다형핵 세포에 대한 감소된 결합, 세포자연사를 유도하는 신호전달의 감소된 유도, 감소된 수지상 세포 성숙 또는 감소된 T 세포 프라이밍(priming).
특정 양상에서, 모든 효과기 기능이 아닌 일부 효과기 기능을 보유하는 이중특이성 항체가 제시되고, 이는 체내 반감기가 중요하지만 특정 효과기 기능(예컨대 보체 또는 ADCC)이 불요하거나 해로운 경우의 적용례에 바람직한 후보가 되게 한다. CDC 및/또는 ADCC 활성의 감소/소실을 확인하기 위해 시험관내 및/또는 체내 세포독성 분석이 수행될 수 있다. 예컨대, 고리 융합 폴리펩티드가 FcγR 결합을 결여하되(예컨대 ADCC 활성을 결여함) FcRn 결합 친화도는 유지함을 확실히 하기 위해 Fc 수용체(FcR) 결합 분석이 수행될 수 있다.
따라서, 특정 양상에서, 본 발명의 이중특이성 항체의 Fc 도메인은 고유 IgG1 Fc 도메인에 비해 Fc 수용체에 대한 감소된 결합 친화도 및/또는 감소된 효과기 기능을 나타낸다. 하나의 양상에서, Fc는 Fc 수용체에 실질적으로 결합하지 않고/거나 효과기 기능을 유도하지 않는다. 특정 양상에서, Fc 수용체는 Fcγ 수용체이다. 하나의 양상에서, Fc 수용체는 인간 Fc 수용체이다. 구체적 양상에서, Fc 수용체는 활성화 인간 Fcγ 수용체, 보다 구체적으로는 인간 FcγRIIIa, FcγRI 또는 FcγRIIa, 가장 구체적으로는 인간 FcγRIIIa이다. 하나의 양상에서, Fc 도메인은 효과기 기능을 유도하지 않는다. 감소된 효과기 기능은 비한정적으로 기 중 하나 이상을 포함할 수 있다: 감소된 보체 의존적 세포독성(CDC), 감소된 항체 의존적 세포 매개된 세포독성(ADCC), 감소된 항체 의존적 식세포작용(ADCP), 감소된 시토카인 분비, 항원 제시 세포에 의한 면역 복합체 매개된 항원 함입의 감소, NK 세포에 대한 감소된 결합, 대식세포에 대한 감소된 결합, 단핵구에 대한 감소된 결합, 다형핵 세포에 대한 감소된 결합, 세포자연사를 유도하는 신호전달의 감소된 유도, 감소된 수지상 세포 성숙 또는 감소된 T 세포 프라이밍.
특정 양상에서, 하나 이상의 아미노산 변형은 본원에 제시되는 이중특이성 항원 결합 분자의 Fc영역에 도입되고, 이네 따라 Fc 영역 변이체가 생성될 수 있다. Fc 영역 변이체는 하나 이상의 아미노산 위치에서 아미노산 변형(예컨대 치환)을 포함하는 인간 Fc 영역 서열(IgG1, IgG2, IgG3 또는 IgG4 영역)을 포함할 수 있다.
특정 양상에서, 본 발명은 스페이서 도메인이 Fc 수용체, 특히 Fcγ 수용체에 대한 결합을 감소시키는 하나 이상의 아미노산 치환을 포함하는, 이중특이성 항원 결합 분자를 제시한다.
하나의 양상에서, 본 발명의 이중특이성 항원 결합 분자의 Fc 도메인은 Fc 수용체에 대한 Fc 도메인의 결합 친화도 및/또는 효과기 기능을 감소시키는 하나 이상의 아미노산 돌연변이를 포함한다. 전형적으로, 동일한 하나 이상의 아미노산 돌연변이가 Fc 도메인의 2개의 아단위 각각에 존재한다. 특히, Fc 도메인은 위치 E233(EU 번호부여), L234, L235, N297, P331 및 P329에서의 아미노산 치환을 포함한다. 특히, Fc 도메인은 IgG 중쇄의 위치 234(EU 번호부여) 및 235, 및 329(EU 번호부여)에서의 아미노산 치환을 포함한다. 보다 특히, IgG 중쇄에서 (카밧에 따른 EU 번호부여로) L234A, L235A 및 P329G(P329GLALA)의 아미노산 치환을 갖는 Fc 도메인을 포함하는 본 발명에 따른 이중특이성 항원 결합 분자가 제시된다. L234A 및 L235A의 아미노산 치환은 이른바 "LALA" 돌연변이를 지칭한다. 아미노산 치환의 P329GLALA 조합은 인간 IgG1 Fc 도메인의 Fcγ 수용체 결합을 완전히 소거하고, 이의 특성, 예컨대 돌연변이 Fc 도메인의 제조 방법 및 Fc 수용체 결합 또는 효과기 기능을 측정하기 위한 방법이 기재되어 있는 WO 2012/130831 A1에 기재되어 있다. "EU 번호부여"는 문헌[EU index of Kabat et al., Sequences of Proteins of Immunological Interest, 5th Ed. Public Health Service, National Institutes of Health, Bethesda, MD, 1991]에 따른 번호부여를 지칭한다.
또한, 감소된 Fc 수용체 결합 및/또는 효과기 기능을 갖는 Fc 도메인은 Fc 도메인 잔기 238, 265, 269, 270, 297, 327 및 329 중 하나 이상의 치환을 갖는 것을 포함한다(US 6,737,056). 이러한 Fc 돌연변이는 아미노산 위치 265, 269, 270, 297 및 327 중 하나 이상에서의 치환, 예컨대 잔기 265 및 296의 알라닌으로의 치환을 갖는 이른바 "DANA"를 포함한다(US 7,332,581).
또 다른 양상에서, Fc 도메인은 IgG4 도메인이다. IgG4 항체는 IgG1 항체에 비해 Fc 수용체에 대한 감소된 결합 친화도 및 감소된 효과기 기능을 나타낸다. 보다 구체적 양상에서, Fc 도메인은 위치 S228(카밧 번호부여)에서의 아미노산 치환, 특히 S228P의 아미노산 치환을 포함하는 IgG4 Fc 도메인이다. 보다 구체적 양상에서, Fc 도메인은 (EU 번호부여로) L235E, S228P 및 P329G의 아미노산 치환을 포함하는 IgG4 Fc 도메인이다. 이러한 IgG4 Fc 도메인 돌연변이 및 이의 Fcγ 수용체 결합 특성은 WO 2012/130831에 기재되어 있다.
돌연변이 Fc 도메인은 주지되어 있는 유전적 또는 화학적 방법을 사용하여 삭제, 치환, 삽입 또는 변형에 의해 제조될 수 있다. 유전적 방법은 DNA 서열 암호화, PCR 및 유전자 합성 등의 위치 특이적 돌연변이생성을 포함할 수 있다.
Fc 수용체에 대한 결합은, 예컨대 표준 계기측정법, 예컨대 비아코어 계기(지이 헬스케어(GE Healthcare))를 사용하여 ELISA 또는 SPR 용이하게 특정될 수 있고, 이러한 Fc 수용체는 재조합 발현에 의해 수득될 수 있다. 적합한 이러한 결합 분석은 본원에 기재되어 있다. 다르게는, Fc 도메인의 결합 친화도 또는 세포 활성화 Fc 수용체에 대한 Fc 도메인을 포함하는 이중특이성 항원 결합 분자는 특정 Fc 수용체를 발현하기 위한 공지되어 있는 세포계, 예컨대 FcγIIIa 수용체를 발현하는 인간 NK 세포를 사용하여 평가될 수 있다.
Fc 도메인 또는 Fc 도메인을 포함하는 본 발명의 이중특이성 항체의 효과기 기능은 당업게에 공지되어 있는 방법에 의해 측정될 수 있다. ADCC를 측정하기에 적합한 분석이 본원에 기재되어 있다. 관심 분자의 ADCC 활성을 평가하기 위한 시험관내 분석의 다른 예는 US 5,500,362; 문헌[Hellstrom et al. Proc Natl Acad Sci USA 83, 7059-7063 (1986)]; 문헌[Hellstrom et al., Proc Natl Acad Sci USA 82, 1499-1502 (1985)]; US 5,821,337; 및 문헌[Bruggemann et al., J Exp Med 166, 1351-1361 (1987)]에 기재되어 있다. 다르게는, 비방사성 분석법이 사용될 수 있다(예컨대 유동 세포측정법을 위한 ACTI(상표명) 비방사성 세포독성 분석(미국 캘리포니아주 마운틴뷰 소재의 셀테크놀로지 인코포레이티드(CellTechnology, Inc.); 및 사이토톡스96(CytoTox96: 등록상표) 비방사성 세포독성 분석(미국 위스콘신주 메디슨 소재의 프로메가(Promega))). 이러한 분석에 유용한 효과기 세포는 말초 혈액 단핵 세포(PBMC) 및 자연 살해(NK) 세포를 포함한다. 다르게는 또는 추가적으로, 관심 분자의 ADCC 활성은 체내에서 평가될 수 있다(예컨대 동물 모델에서, 예를 들어 문헌[Clynes et al., Proc Natl Acad Sci USA 95, 652-656 (1998)]에 개시되어 있는 것).
일부 양태에서, 보체 성분, 구체적으로는 C1q에 대한 Fc 도메인의 결합이 감소된다. 따라서, Fc 도메인이 감소된 효과기 기능을 갖도록 변형된 일부 양태에서, 상기 감소된 효과기 기능은 감소된 CDC를 포함한다. C1q 결합 분석이 본 발명의 이중특이성 항체가 C1q에 결합가능하고 이에 따라 CDC 활성을 갖는지 여부를 확인하기 위해 수행될 수 있다. 예컨대 WO 2006/029879 및 WO 2005/100402에서 C1q 및 C3c 결합 ELISA를 참고한다. 보체 활성을 평가하기 위해, CDC 분석이 수행될 수 있다(예컨대 문헌[Gazzano-Santoro et al., J Immunol Methods 202, 163 (1996)]; 문헌[Cragg et al., Blood 101, 1045-1052 (2003)]; 및 문헌[Cragg and Glennie, Blood 103, 2738-2743 (2004)] 참고).
특정 양상에서, 이중특이성 항원 결합 분자는 하기를 포함한다(모든 위치는 카밧의 EU 색인에 따름):
(i) 인간 IgG1 아강의 동종이량체 Fc 영역(임의적으로 돌연변이 P329G, L234A 및 L235A를 가짐);
(ii) 인간 IgG4 아강의 동종이량체 Fc 영역(임의적으로 돌연변이 P329G, S228P 및 L235E를 가짐);
(iii) 인간 IgG1 아강의 동종이량체 Fc 영역(임의적으로 돌연변이 P329G, L234A, L235A, I253A, H310A 및 H435A; 또는 임의적으로 돌연변이 P329G, L234A, L235A, H310A, H433A 및 Y436A를 가짐);
(iv) (a) 하나의 Fc 영역 폴리펩티드가 돌연변이 T366W를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A 및 Y407V를 갖는 이종이량체 Fc 영역을 포함하고, (b) 하나의 Fc 영역 폴리펩티드가 돌연변이 T366W 및 Y349C를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A, Y407V 및 S354C를 포함하고, (c) 하나의 Fc 영역 폴리펩티드가 T366W 및 S354C를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A, Y407V 및 Y349C를 포함하는 이종이량체 Fc 영역;
(v) Fc 영역 폴리펩티드 둘다가 돌연변이 P329G, L234A 및 L235A를 포함하고, (a) 하나의 Fc 영역 폴리펩티드가 돌연변이 T366W를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A 및 Y407V를 갖는 이종이량체 Fc 영역을 포함하고, (b) 하나의 Fc 영역 폴리펩티드가 돌연변이 T366W 및 Y349C를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A, Y407V 및 S354C를 포함하고, (c) 하나의 Fc 영역 폴리펩티드가 T366W 및 S354C를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A, Y407V 및 Y349C를 포함하는, 인간 IgG1 아강의 이종이량체 Fc 영역;
(vi) Fc 영역 폴리펩티드 둘다가 돌연변이 P329G, S228P 및 L235E를 포함하고, (a) 하나의 Fc 영역 폴리펩티드가 돌연변이 T366W를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A 및 Y407V를 갖는 이종이량체 Fc 영역을 포함하고, (b) 하나의 Fc 영역 폴리펩티드가 돌연변이 T366W 및 Y349C를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A, Y407V 및 S354C를 포함하고, (c) 하나의 Fc 영역 폴리펩티드가 T366W 및 S354C를 포함하고 다른 하나의 Fc 영역 폴리펩티드가 돌연변이 T366S, L368A, Y407V 및 Y349C를 포함하는, 인간 IgG4 아강의 이종이량체 Fc 영역; 또는
(vii) 상기 (i), (ii) 및 (iii) 중 하나와 상기 (vi), (v) 및 (vi) 중 하나의 조합.
본원에 보고된 이중특이성 항체에 포함된 융합 폴리펩티드의 C-말단은 아미노산 잔기 PGK로 종결되는 완전한 C-말단일 수 있다. C-말단은 C-말단 아미노산 잔기 중 1개 또는 2개가 제거된 단축된 C-말단일 수 있다. 하나의 바람직한 양태에서, C-말단은 아미노산 잔기 PG로 종결되는 단축된 C-말단이다.
일부 양상에서, 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인은 종양 관련 항원(TAA)에 특이적으로 결합가능한 항원 결합 도메인이다. 특히, 종양 관련 항원은 섬유아세포 활성화 단백질(FAP)이다. 하나의 양상에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인이 FAP에 특이적으로 결합가능한 항원 결합 도메인인 이중특이성 항체가 제시된다.
TNF 수용체 및 FAP에 대한 이중특이성 항체 결합
일부 양상에서, FAP에 특이적으로 결합가능한 항원 결합 도메인은
(a) (i) 서열번호 1의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 2의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 3의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHFAP), 및 (iv) 서열번호 4의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 5의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 6의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLFAP); 또는
(b) (i) 서열번호 9의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 10의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 11의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHFAP), 및 (iv) 서열번호 12의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 13의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 14의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLFAP)를 포함한다.
보다 특히, FAP에 특이적으로 결합가능한 항원 결합 도메인은
(a) 서열번호 7의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHFAP), 및 서열번호 8의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 경쇄 가변부(VLFAP); 또는
(b) 서열번호 15의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHFAP), 및 서열번호 16의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 경쇄 가변부(VLFAP)를 포함한다.
하나의 특정 양상에서, FAP에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 7의 아미노산 서열을 포함하는 중쇄 가변부(VHFAP) 및 서열번호 8의 아미노산 서열을 포함하는 경쇄 가변부(VLFAP)를 포함한다. 하나의 양상에서, FAP에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 7의 아미노산 서열을 포함하는 중쇄 가변부(VHFAP) 및 서열번호 8의 아미노산 서열을 포함하는 경쇄 가변부(VLFAP)로 이루어진다.
또 다른 양상에서, FAP에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 15의 아미노산 서열을 포함하는 중쇄 가변부(VHFAP) 및 서열번호 16의 아미노산 서열을 포함하는 경쇄 가변부(VLFAP)를 포함한다. 하나의 양상에서, FAP에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 15의 아미노산 서열을 포함하는 중쇄 가변부(VHFAP) 및 서열번호 16의 아미노산 서열을 포함하는 경쇄 가변부(VLFAP)로 이루어진다.
하나의 양상에서, 본원에 제시되는 이중특이성 항체는 FAP에 1가 결합한다.
OX40 및 FAP에 대한 이중특이성 항체 결합
일부 양상에서, 제1 표적에 특이적으로 결합가능한 항원 경합 도메인이 TNF 수용체, 특히 공동자극 TNF 수용체에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 공동자극 TNF 수용체는 OX40이다. 하나의 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 OX40에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 본 발명의 이중특이성 항체는 OX40에 특이적으로 결합가능한 2개의 항원 결합 도메인을 포함한다.
일부 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은
(a) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 22의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 35의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40);
(b) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 21의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 34의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40);
(c) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 23의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 36의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40);
(d) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 24의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 37의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40);
(e) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 25의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 29의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 32의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 38의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40);
(f) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 26의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 29의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 32의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 38의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40); 또는
(g) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 27의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 30의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 33의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 39의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40)
를 포함한다.
특히, OX40에 특이적으로 결합가능한 항원 결합 도메인은 (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 22의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOX40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 35의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOX40)를 포함한다.
일부 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은
(a) 서열번호 40의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 41의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(b) 서열번호 42의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 43의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(c) 서열번호 44의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 45의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(d) 서열번호 46의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 47의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(e) 서열번호 48의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 49의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
(f) 서열번호 50의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 51의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40); 또는
(g) 서열번호 52의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 53의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40)를 포함한다.
특정 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은 (a) 서열번호 40의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHOX40), 및 서열번호 41의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VLOX40)를 포함한다.
하나의 특정 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 40의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 41의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40)를 포함한다. 하나의 양상에서, OX40에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 40의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 41의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40)로 이루어진다.
하나의 양상에서, OX40에 특이적으로 결합가능한 2개의 항원 결합 도메인이 서열번호 40의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 41의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40)를 포함하는, 이중특이성 항체가 제시된다.
보다 특히, 본 발명은
(a) 서열번호 54의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 55의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(b) 서열번호 56의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 57의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(c) 서열번호 58의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 59의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(d) 서열번호 60의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 61의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(e) 서열번호 62의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 63의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(f) 서열번호 64의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 65의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드; 또는
(g) 서열번호 66의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 67의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드
를 포함하는 이중특이성 항체를 제시한다.
하나의 양상에서, 이중특이성 항체는
(a) 서열번호 54의 아미노산 서열을 포함하는 제1 융합 폴리펩티드 및 서열번호 55의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(b) 서열번호 56의 아미노산 서열을 포함하는 제1 융합 폴리펩티드 및 서열번호 57의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(c) 서열번호 58의 아미노산 서열을 포함하는 제1 융합 폴리펩티드 및 서열번호 59의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(d) 서열번호 60의 아미노산 서열을 포함하는 제1 융합 폴리펩티드 및 서열번호 61의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(e) 서열번호 62의 아미노산 서열을 포함하는 제1 융합 폴리펩티드 및 서열번호 63의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(f) 서열번호 64의 아미노산 서열을 포함하는 제1 융합 폴리펩티드 및 서열번호 65의 아미노산 서열을 포함하는 제2 융합 폴리펩티드; 또는
(g) 서열번호 66의 아미노산 서열을 포함하는 제1 융합 폴리펩티드 및 서열번호 67의 아미노산 서열을 포함하는 제2 융합 폴리펩티드
를 포함한다.
또한, 본 발명은
(a) 서열번호 116의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 117의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(b) 서열번호 118의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 119의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(c) 서열번호 120의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 121의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(d) 서열번호 122의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 123의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(e) 서열번호 124의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 125의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(f) 서열번호 126의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 서열번호 127의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드, 및 서열번호 128의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 경쇄;
(g) 서열번호 129의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 130의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(h) 서열번호 131의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 132의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드; 또는
(i) 서열번호 133의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 134의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드
를 포함하는 이중특이성 항체를 제시한다.
하나의 양상에서, 이중특이성 항체는
(a) 서열번호 116의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 117의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(b) 서열번호 118의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 119의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(c) 서열번호 120의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 121의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(d) 서열번호 122의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 123의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(e) 서열번호 124의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 125의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(f) 서열번호 126의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 서열번호 127의 아미노산 서열을 포함하는 제2 융합 폴리펩티드, 및 서열번호 128의 아미노산 서열을 포함하는 경쇄;
(g) 서열번호 129의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 130의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(h) 서열번호 131의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 132의 아미노산 서열을 포함하는 제2 융합 폴리펩티드; 또는
(i) 서열번호 133의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 134의 아미노산 서열을 포함하는 제2 융합 폴리펩티드
를 포함한다.
4- 1BB 및 FAP에 대한 이중특이성 항체 결합
일부 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 TNF 수용체에 특이적으로 결합가능한 항원 결합 도메인이되, 공동자극 TNF가 4-1BB인, 이중특이성 항체가 제시된다. 하나의 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 4-1BB에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 본 발명의 이중특이성 항체는 4-1BB에 특이적으로 결합가능한 2개의 항원 결합 도메인을 포함한다.
일부 양상에서, 4-1BB에 특이적으로 결합가능한 항원 결합 도메인은 (i) 서열번호 135의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 136의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 137의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VH4-1BB), 및 (iv) 서열번호 138의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 139의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 140의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VL4-1BB)를 포함한다. 하나의 양상에서, 4-1BB에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 141의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VH4-1BB), 및 서열번호 142의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VL4-1BB)를 포함한다.
하나의 특정 양상에서, 4-1BB에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 141의 아미노산 서열을 포함하는 중쇄 가변부(VH4-1BB) 및 서열번호 142의 아미노산 서열을 포함하는 경쇄 가변부(VL4-1BB)를 포함한다. 하나의 특정 양상에서, 4-1BB에 특이적으로 결합가능한 항원 결합 도메인은 서열번호 141의 아미노산 서열을 포함하는 중쇄 가변부(VH4-1BB) 및 서열번호 142의 아미노산 서열을 포함하는 경쇄 가변부(VL4-1BB)로 이루어진다.
특히, 본 발명은
(a) 서열번호 143의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 144의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드; 또는
(b) 서열번호 145의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 146의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드
를 포함하는 이중특이성 항체를 제시한다.
하나의 양상에서, 이중특이성 항체는
(a) 서열번호 143의 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 144의 아미노산 서열을 포함하는 융합 폴리펩티드; 또는
(b) 서열번호 145의 아미노산 서열을 포함하는 융합 폴리펩티드, 및 서열번호 146의 아미노산 서열을 포함하는 융합 폴리펩티드
를 포함한다.
CD40 및 FAP에 대한 이중특이성 항체 결합
일부 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 TNF 수용체에 특이적으로 결합가능한 항원 결합 도메인이되, 공동자극 TNF 수용체가 CD40인, 이중특이성 항체가 제시된다. 하나의 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 CD40에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체가 제시된다. 특히, 본 발명의 이중특이성 항체는 CD40에 특이적으로 결합가능한 2개의 항원결합 도메인을 포함한다.
CD40에 특이적으로 결합가능한 항원 결합 도메인은 (i) 서열번호 147의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 148의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 149의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHCD40), 및 (iv) 서열번호 150의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 151의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 152의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLCD40)를 포함한다. 하나의 양상에서, CD40에 특이적으로 결합가능한 항원 결합 도메인이 서열번호 153의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 154의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VLCD40)를 포함한다.
또 다른 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인은
(i) 서열번호 167, 서열번호 168, 서열번호 169 및 서열번호 170으로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 171, 서열번호 172, 서열번호 173 및 서열번호 174로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 경쇄 가변부(VLCD40); 또는
(ii) 서열번호 175, 서열번호 176, 서열번호 177, 서열번호 178, 서열번호 179 및 서열번호 180으로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 181, 서열번호 182, 서열번호 183 및 서열번호 184로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 경쇄 가변부(VLCD40)를 포함하는 CD40에 특이적으로 결합가능한 항원 결합 도메인이다.
하나의 양상에서, 제1 표적에 특이적으로 결합가능한 항원 결합 도메인은
(a) 서열번호 153의 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 154의 아미노산 서열을 포함하는 중쇄 가변부(VLCD40); 또는
(b) 서열번호 167의 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 171의 아미노산 서열을 포함하는 중쇄 가변부(VLCD40)
를 포함하는, CD40에 특이적으로 결합가능한 항원 결합 도메인이다.
특히, 본 발명은
(a) 서열번호 155의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 156의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(b) 서열번호 157의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 158의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(c) 서열번호 159의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 160의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(d) 서열번호 161의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 162의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(e) 서열번호 163의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 164의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드; 또는
(f) 서열번호 165의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 166의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 동일한 아미노산 서열을 포함하는 제2 융합 폴리펩티드
를 포함하는 이중특이성 항체를 제시한다.
하나의 양상에서, 이중특이성 항체는
(a) 서열번호 155의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 156의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(b) 서열번호 157의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 158의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(c) 서열번호 159의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 160의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(d) 서열번호 161의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 162의 아미노산 서열을 포함하는 제2 융합 폴리펩티드;
(e) 서열번호 163의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 164의 아미노산 서열을 포함하는 제2 융합 폴리펩티드; 또는
(f) 서열번호 165의 아미노산 서열을 포함하는 제1 융합 폴리펩티드, 및 서열번호 166의 아미노산 서열을 포함하는 제2 융합 폴리펩티드
를 포함한다.
Fab 도메인의 변형
하나의 양상에서, 본 발명은 (a) OX40에 특이적으로 결합가능한 2개의 Fab 단편; 및 (b) FAP에 특이적으로 결합가능한 1개의 Fab 단편을 포함하는 이중특이성 항체에 관한 것으로서, 여기서 Fab 단편에서 (a) 및 (b) 중 하나에서, 가변 도메인 VH와 VL 또는 불변 도메인 CH1와 CL은 교환된다. 이중특이성 항체는 크로스맙(Crossmab) 기술에 따라 제조된다.
하나의 결합 손(크로스맙VH-CL 또는 크로스맙CH-CL)에서 도메인 대체/교환을 갖는 다중특이성 항체는 WO 2009/080252 및 문헌[Schaefer, W. et al, PNAS, 108 (2011) 11187-1191]에 기재되어 있다. 이는 (이러한 도메인 교환 없이 접근법에 비해) 제1 항원에 대한 경쇄와 제2 항원에 대한 잘못된 중쇄의 부정합에 의해 야기되는 부생성물의 현저히 감소시킨다.
하나의 양상에서, 본 발명은 (a) OX40에 특이적으로 결합가능한 2개의 Fab 단편; 및 (b) FAP에 특이적으로 결합가능한 1개의 교차 Fab 단편을 포함하는 이중특이성 항체에 관한 것으로서, 여기서 불변 도메인 CL(C카파) 및 CH1은 서로 대체됨으로써, CH1 도메인이 VL 도메인에 융합되고 CL 도메인이 VH 도메인에 융합된다.
또 다른 양상에서, 본 발명은 (a) VH 도메인이 CL(C카파) 도메인에 융합되고 VL 도메인이 CH1 도메인에 융합된, OX40에 특이적으로 결합가능한 2개의 교차 Fab 단편; 및 (b) FAP에 특이적으로 결합가능한 Fab 단편을 포함하는 이중특이성 항체에 관한 것이다.
또 다른 양상에서, 정확한 짝지음을 더욱 개선하기 위해, 이중특이성 항체는 상이한 하전된 아미노산 치환(이른바 "하전된 잔기")를 함유할 수 있다. 이러한 변형은 교차된 또는 비교차된 CH1 및 CL 도메인에 도입된다. 특정 양상에서, 보 발명은 CL 도메인 중 하나에서, 위치 123(EU 번호부여)에서의 아미노산이 아르기닌(R)로 대체되고 위치 124(EU 번호부여)에서의 아미노산이 리신(K)(양전하)로 대체되고, CH1 도메인 중 하나에서, 위치 147(EU 번호부여) 및 213(EU 번호부여)에서의 아미노산이 글루탐산(E)(음전하)으로 치환된, 이중특이성 항체에 관한 것이다.
보다 특히, 본 발명은 CL 도메인에서, 위치 123(EU 번호부여)에서의 아미노산이 아르기닌(R)으로 대체되고 위치 124(EU 번호부여)에서의 아미노산이 리신(K)로 치환되고, CH1 도메인에서, 위치 147(EU 번호부여) 및 위치 213(EU 번호부여)에서의 아미노산이 글루탐산(E)으로 대체된, Fab를 포함하는 이중특이성 항원 결합 분자에 관한 것이다.
따라서, 일부 양태에서, 본 발명의 이중특이성 항원 결합 분자의 Fab 단편(예컨대 OX40에 특이적으로 결합가능한 Fab 단편)은 위치 123(EU 번호부여)에서의 아미노산에서 아르기닌(R) 및 위치 124(EU 번호부여)에서의 아미노산에서 리신(K)을 포함하는 CL 도메인; 및 위치 147(EU 번호부여)에서의 아미노산에서 글루탐산(E) 및 위치 213(EU 번호부여)에서의 아미노산에서 글루탐산(E)을 포함하는 CH1 도메인을 포함한다.
폴리뉴클레오티드
또한, 본 발명은 본원에 기재된 본 발명의 이중특이성 항체를 암호화하는 단리된 핵산 또는 이의 단편을 제시한다.
본 발명의 이중특이성 항체를 암호화하는 단리된 핵산은 전체 항원 결합 분자를 암포화하는 단일 폴리뉴클레오티드 또는 공동발현되는 다수(예컨대 2개 이상)의 폴리뉴클레오티드로서 발현될 수 있다. 공동발현되는 폴리뉴클레오티드에 의해 암호화되는 폴리펩티드는, 예컨대 다이설파이드 결합 또는 다른 방법에 의해 회합되어 기능 항원 결합 분자를 형성할 수 있다. 공동발현시, 융합 폴리펩티드는 회합되어 제2 표적(예컨대 FAP)에 특이적으로 결합가능한 항원 결합 도메인을 형성할 것이다. 제1 표적(예컨대 OX40)에 특이적으로 결합가능한 항원 결합 도메인은 하나의 폴리뉴클레오티드에 의해 암호화될 수 있다. 공동발현시, 융합 폴리펩티드는 이중특이성 항체와 회합될 것이다.
특정 양태에서, 폴리뉴클레오티드 또는 핵산은 DNA이다. 다른 양태에서, 본 발명의 폴리뉴클레오티드는 RNA, 예컨대 메신저 RNA(mRNA)의 형태이다. 본 발명의 RNA는 단일 가닥 또는 이중 가닥일 수 있다.
본 발명의 또 다른 양상에 따라, 본원에 전술한 융합 폴리펩티드를 암호화하는 단리된 폴리뉴클레오티드가 제시된다. 또한, 본 발명은 본 발명의 단리된 폴리뉴클레오티드 벡터, 특히 발현 벡터; 및 본 발명의 단리된 폴리뉴클레오티드 또는 벡터를 포함하는 숙주 세포를 제시한다. 일부 양태에서, 숙주 세포는 진핵 세포, 특히 포유동물 세포이다.
또 다른 양상에서, (i) 본발명의 이중특이성 항체의 발현에 적합한 조건하에 본 발명의 숙주 세포를 배양하는 단계; 및 (ii) 상기 이중특이성 항체를 단리하는 단계를 포함하는 본 발명의 이중특이성 항체의 제조 방법이 제시된다. 또한, 본 발명은 본 발명의 발법에 의해 제조된 이중특이성 항체를 포괄한다.
재조합 방법
본 발명의 이중특이성 항원 결합 분자는, 예컨대 고체 상태 펩티드 합성(예컨대 메리필드(Merrifield) 고체 상 합성) 또는 재조합 제조에 의해 수득될 수 있다. 재조합 제조의 경우, 항원 결합 분자 또는 이의 폴리펩티드 단편(예컨대 전술한 것)을 암호화하는 하나 이상의 폴리뉴클레오티드는 단리되고 숙주 세포에서의 추가 클로닝 및/또는 발현을 위해 하나 이상의 벡터로 삽입된다. 이러한 폴리뉴클레오티드는 통상적인 절차를 사용하여 용이하게 단리되고 서열분석될 수 있다. 본 발명의 하나의 양상에서, 본 발명의 하나 이상의 폴리뉴클레오티드를 포함하는 벡터, 바람직하게는 발현 벡터가 제시된다. 당업자에게 주지되어 있는 방법이 이중특이성 항원 결합 분자(단편)의 암호화 서열을 함유하는 발현 벡터를 적절한 전사/번역 제어 신호와 함께 구축하는데 사용될 수 있다. 이러한 방법은 시험관내 재조합 DNA 기법, 합성적 기법 및 체내 재조합/유전적 재조합을 포함한다. 예컨대, 문헌[aniatis et al., MOLECULAR CLONING: A LABORATORY MANUAL, Cold Spring Harbor Laboratory, N.Y. (1989)]; 및 문헌[Ausubel et al., CURRENT PROTOCOLS IN MOLECULAR BIOLOGY, Greene Publishing Associates and Wiley Interscience, N.Y. (1989)]에 기재된 기법을 참고한다. 발현 벡터는 플라스미드 또는 바이러스의 일부이거나, 핵산 단편일 수 있다. 발현 벡터는 발현 카세트를 포함하고, 여기에 이중특이성 항원 결합 분자 또는 이의 폴리펩티드 단편(즉 코딩 영역)을 암호화하는 폴리뉴클레오티드가 프로모터 및/또는 기타 전사 또는 번역 제어 요소와의 작동가능한 회합으로 클로닝된다. 본원에 사용된 "코딩 영역"은 아미노산으로 번역되는 코돈으로 이루어진 핵산의 일부이다. "정지 코돈"(TAG, TGA 또는 TAA)은 아미노산으로 번역되지는 않지만, 코딩 영역의 일부로서 간주될 수 있고, 그러나, 임의의 측면 서열(flanking sequence), 예컨대 프로모터, 리보솜 결합 부위, 전사 종결자, 인트론, 및 5' 및 3' 미번역된 영역 등이 존재하는 경우, 이들은 코딩 영역의 일부가 아니다. 2개 이상의 코딩 영역은 단일 폴리뉴클레오티드 구조물, 예컨대 단일 벡터, 또는 개별의 폴리뉴클레오티드 구조물, 예컨대 개별의 (상이한) 벡터에 존재할 수 있다. 또한, 임의의 벡터는 코딩 영역을 함유할 수 있거나, 2개 이상의 코딩 영역을 포함할 수 있고, 예컨대 본 발명의 벡터는 번역후 또는 번역과 동시에 단백질분해성 절단을 통해 최종 단백질로 분리될 수 있는 하나 이상의 폴리펩티드를 암화화할 수 있다. 또한, 본 발명의 백터, 폴리뉴클레오티드 또는 핵산은 이종 코딩 영역(본 발명의 이중특이성 항원 결합 분자 또는 이의 단편, 또는 이의 변이체 또는 유도체)을 암호화할 수 있다. 이종 코딩 영역은 비한정적으로 특화된 요소 또는 모티프, 예컨대 분비 신호 펩티드 또는 이종 기능 도메인을 포함한다. 작동가능한 회합은 유전자 생성물, 예컨대 폴리펩티드를 위한 코딩 영역이 조절 서열의 영향 또는 제어하에 하나 이상의 조절 서열과 회합되는 경우이다. 2개의 DNA 단편(예컨대 폴리펩티드 코딩 영역 및 이에 회합된 프로모터)은 프로모터 기능의 유도가 목적 유전자 생성물을 암호화하는 mRNA의 전사를 야기하는 경우 및 상기 2개의 DNA간의 연결의 성질이 유전자 생성물의 발현을 유도하는 발형 조절 서열의 능력을 방해하지 않거나 전사될 DNA 주형의 능력을 방해하지 않는 경우가 "작동가능하게 회합된" 것이다. 따라서, 프로모터 영역은 프로모터가 핵산의 전사를 수행할 수 잇는 경우 폴리펩티드를 암호화하는 핵산에 의해 작동가능하게 회합될 것이다. 프로모터는 예정된 세포에서만 DNA의 실질적인 전사를 유도하는 세포-특이성 프로모터일 수 있다. 프로모터 이외의 기타 전사 제어 요소, 예컨대 증폭자, 작동유전자, 억제자 및 전사 종결 신호는 폴리뉴클레오티드와 작동가능하게 회합되어 세포 특이적 전사를 유도한다.
적합한 프로모터 및 기타 전사 제어 영역이 본원에 개시된다. 다양한 전사 제어 영역은 당업자에게 공지되어 있다. 이는 비한정적으로 척추동물 세포에서 기능하는 전사 제어 영역, 예컨대 비한정적으로 거대세포바이러스(예컨대 전초기 프로모터, 인트론 A와 접합), 유인원 바이러스 40(예컨대 전초기 프로모터) 및 레트로바이러스(예컨대 라우스 육종 바이러스)로부터의 프로포터 및 증폭자 분절을 포함한다. 기타 전사 제어 영역은 척추동물 유전자로부터 유도된 것, 예컨대 액틴, 열 충격 단백질, 소의 성장 호르몬 및 토끼 α-글로빈, 및 진핵세포에서 발현 유전자의 제어가 가능한 기타 서열을 포함한다. 추가로 적합한 전제 제어 영역은 조직 특이성 프로모터 및 증폭자, 및 유도성 프로모터(예컨대 테트라사이클린을 포함하는 프로모터)를 포함한다. 유사하게, 다양한 번역 제어 요소가 당업자에게 공지되어 있다. 이는 비한정적으로 리보솜 결합 부위, 번역 개시 및 종결 코돈, 및 바이러스 시스템으로부터 유도된 요소(특히 내부 리보솜 진입 부위 또는 IRES(CITE 서열로도 지칭됨))를 포함한다. 발현 카세트는 다른 특징, 예컨대 복제 원점, 및/또는 염색체 통합 요소, 예컨대 레트로 바이러스 긴 말단 반복(LTR), 또는 아데노 관련 바이러스(AAV) 역위 말단 반복(ITR)을 포함한다.
본 발명의 폴리뉴클레오티드 및 핵산 코딩 영역은 분비 또는 신호 펩티드를 암호화하는 추가의 코딩 영역과 회합될 수 있고, 이는 본 발명의 폴리뉴클레오티드에 의해 암호화되는 폴리펩티드의 분비를 유도한다. 예컨대 이중특이성 항원 결합 분자 또는 폴리펩티드 단편의 분비가 목적되는 경우, 신호 서열을 암호화하는 DNA 서열은 본 발명의 이중특이성 항원 결합 분자 또는 이의 폴리펩티드 단편을 암호화하는 핵산의 상류에 위치할 수 있다. 합성 가설에 따라, 포유동물 세포에 의해 분비되는 단백질은 조면 소포체에 걸쳐 성장하는 단백질 쇄의 반출이 개시되면 성숙한 단백질로부터 절단되는 신호 펩티드 또는 분비 선도 서열을 갖는다. 일반적으로, 당업자는 척추동물 세포에 의해 분비되는 폴리펩티드가 번역된 폴리펩티드로부터 절단되어 분비되거나 성숙한 형태의 폴리펩티드를 생성하는 폴리펩티드의 N-말단에 융합되는 신호 펩티드를 가짐을 알고 있다. 특정 양태에서, 고유 신호 펩티드, 예컨대 면역글로불린 중쇄 또는 경쇄 신호 펩티드가 사용되거나, 작동가능하게 회합되는 폴리펩티드의 분비를 유도하는 능력을 유지하는 서열의 기능 유도체가 사용된다. 다르게는, 이종 포유동물 신호 펩티드 또는 이의 기능 유도체가 사용될 수 있다. 예컨대 야생형 선도 서열은 인간 조직 플라스미노겐 활성자(TPA) 또는 마우스 β-글루쿠로니다제의 선도 서열로 치환될 수 있다.
나중의 정제(예컨대 히스티딘 태그)를 용이하게 하거나 융합 단백질의 표지를 보조하는데 사용될 수 있는 짧은 단백질 서열을 암호화하는 DNA 암화화는 본 발명의 이중특이성 항원 결합 분자 또는 이의 폴리펩티드 단편을 암호화하는 폴리뉴클레오티드 내에 또는 이의 말단에 포함될 수 있다.
본 발명의 추가의 양상에서, 본 발명의 하나 이상의 본 발명의 폴리뉴클레오티드를 포함하는 숙주 세포가 제시된다. 특정 양태에서, 하나 이상의 본 발명의 벡터를 포함하는 숙주 세포가 제시된다. 폴리뉴클레오티드 및 벡터는 폴리뉴클레오티드 및 벡터와 관련하여 본원에 기재된 임의의 특징을 단독으로 또는 조합으로 혼입할 수 있다. 하나의 양상에서, 숙주 세포는 본 발명의 이중특이성 항원 결합 분자(의 부분)를 암호화하는 폴리뉴클레오티드를 포함하는 벡터를 포함한다(예컨대 형질전환되거나 형질감염됨). 본원에 사용된 용어 "숙주 세포"는 본 발명의 융합 단백질 또는 이의 단편을 생성하도록 변형될 수 있다. 복제, 및 항원 결합 분자의 발현을 지원하는데 적합한 숙주 세포는 당업계에 주지되어 있다. 이러한 세포는 필요에 따라 특정 발현 벡터에 의해 형질감염되거나 형질도입될 수 있고, 벡터를 함유하는 다량의 세포는 대규모 배양기에 파종되어 배양되어 임상 적용례를 위한 충분량의 항원 결합 분자가 수득될 수 있다. 적합한 숙주 세포는 원핵 미생물, 예컨대 E. Coli 또는 다양한 진핵 세포, 예컨대 차이니즈 햄스터 난세포(CHO), 인간 배아 신장(HEK) 세포 또는 곤충 세포 등을 포함한다. 예컨대, 폴리펩티드는 당화가 필요치 않을 때 박테리아에서 생성될 수 있다. 발현 후, 폴리펩티드는 가용성 분획 중 박테리아 세포 페이스트로부터 단리될 수 있고 추가로 정제될 수 있다. 원핵생물, 원핵 미생물, 예컨대 사상성 진균 또는 효모가 폴리펩티드 암호화 벡터에 적합한 클로닝 또는 발현 숙주이고, 부분적으로 또는 전적으로 인간 당화 패턴을 갖는 폴리펩티드의 생성을 야기하는 당화 경로가 인간화된 효모 및 진균 균주도 포함된다. 문헌[Gerngross, Nat Biotech 22, 1409-1414 (2004)]; 및 문헌[Li et al., Nat Biotech 24, 210-215 (2006)]을 참고한다.
또한, (당화) 폴리펩티드의 발현에 적합한 숙주 세포는 다세포 개체(무척추동물 및 척추동물)로부터 유도된다. 무척추동물 세포의 예는 실물 및 곤충 세포를 포함한다. 다수의 바큘로 바이러스 균주가 곤충 세포와의 접합, 특히 스포도프테라 프루지페르다(Spodoptera frugiperda) 세포의 형질감염에 사용될 수 있는 것으로 확인되었다. 또한, 식물 세포가 숙주로서 이용될 수 있다. 예컨대 US 5,959,177, US 6,040,498, US 6,420,548, US 7,125,978 및 US 6,417,429를 참고한다(형질전환 식물에서 항체 생성을 위한 플랜티바디스(PLANTIBODIES: 상표명) 기술이 기재되어 있음). 또한, 척추동물 세포가 숙주로서 사용될 수 있다. 예컨대 현탁액에서 성장하도록 적응된 포유동물 세포계가 유용할 수 있다. 유용한 포유동물 숙주 세포의 다른 예는 SV40(COS-7)에 의해 형질전환된 원숭이 신장 CV1 세포계, 인간 배아 신장 세포계(예컨대 문헌[Graham et al., J Gen Virol 36, 59 (1977)]에 기재된 293 또는 293T), 아기 햄스터 신장 세포(BHK), 마우스 세르톨리 세포(예컨대 문헌[Mather, Biol Reprod 23, 243-251 (1980)]에 기재된 TM4 세포), 원숭이 신장 세포(CV1), 아프리카 녹색 원숭이 신장 세포(VERO-76), 인간 척추 암종 세포(HELA), 개의 간 세포(Hep G2), 마우스 유방 종양 세포(MMT 060562), TRI 세포(예컨대 문헌[Mather et al., Annals N.Y. Acad Sci 383, 44-68 (1982)]에 기재됨), MRC 5 세포 및 FS4 세포이다. 기타 유용한 포유동물 세포계는 차이니즈 햄스터 난소(CHO) 세포, 예컨대 dhfr-CHO 세포(문헌[Urlaub et al., Proc Natl Acad Sci USA 77, 4216 (1980)]); 및 골수종 세포계, 예컨대 YO, NS0, P3X63 및 Sp2/0을 포함한다. 단백질 제조에 적합한 포유동물 숙주 세포계의 개관은, 예컨대 문헌[Yazaki and Wu, Methods in Molecular Biology, Vol. 248 (B.K.C. Lo, ed., Humana Press, Totowa, NJ), pp. 255-268 (2003)]을 참고한다. 숙주 세포는 배양된 세포, 예컨대 포유동물 세포, 효모 세포, 곤충 세포, 박테리아 세포 및 식물 세포, 및 형질전환 동물 또는 형질전환 식물, 또는 배양된 식물 또는 동물 조직에 포함된 세포를 포함한다. 하나의 양태에서, 숙주세포는 진핵 세포, 바람직하게는 포유동물 세포, 예컨대 차이니즈 햄스터 난소(CHO) 세포, 인간 배아 신장(HEK) 세포 또는 림프종 세포(예컨대 Y0, NS0 또는 Sp20 세포)이다. 상기 시스템에서 외래 유전자를 발현하기 위한 표준적인 기술이 당업계에 공지되어 있다. 항원 결합 도메인의 중쇄 또는 경쇄를 포함하는 폴리펩티드를 발현하는 세포는 다른 면역글로불린 쇄들도 발현함으로써 발현되는 생성물이 중쇄 및 경쇄를 갖는 항원 결합 도메인이 되도록 변경될 수 있다.
또 다른 양상에서, (i) 본 발명의 이중특이성 항체의 발현에 적합한 조건하에 본 발명의 숙주 세포를 배양하는 단계, 및 (ii) 상기 숙주 세포 또는 숙주 세포 배양 배지로부터 상기 이중특이성 항체를 단리하는 단계를 포함하는 본 발명의 이중특이성 항체의 제조 방법이 제시된다.
이중특이성 항체의 성분은 서로 유전적으로 융합된다. 이중특이성 항원 결합 분자는 이의 성분이 서로 직접 융합되거나 연결자 서열을 통해 간접적으로 연결되도록 설계될 수 있다. 연결자의 조성 및 길이는 당업계에 주지되어 있는 방법에 따라 결정될 수 있고 효능에 대해 시험될 수 있다. 이중특이성 항원 결합 분자의 상이한 성분들간의 연결자 서열의 예는 본원에 제시되는 서열에서 찾을 수 있다. 또한, 필요에 따라, 추가의 서열, 예컨대 엔도펩티다제 인식 서열이 융합의 개별 성분이 분리되도록 하는 절단 부위를 혼입하도록 포함될 수 있다.
특정 양상에서, 항체의 부분을 형성하는 FAP에 특이적으로 결합가능한 항원 결합 도메인(예컨대 Fab 단편 또는 scFv)는 FAP에 결합가능한 하나 이상의 면역글로불린 가변부를 포함한다. 유사하게, 특정 양상에서, OX40에 특이적으로 결합가능한 잔기(예컨대 Fab 단편 또는 scFv)는 OX40에 결합가능한 하나 이상의 면역글로불린 가변부를 포함한다. 가변부는 자연 또는 비자연 발생 항체 및 이의 단편의 일부를 형성하거나 이로부터 유도될 수 있다. 다클론 항체 및 단클론 항체를 제조하는 방법은 당업계에 공지되어 있다(예컨대 문헌[Harlow and Lane, "Antibodies, a laboratory manual", Cold Spring Harbor Laboratory, 1988] 참고). 비자연 발생 항체는 고체상 합성을 사용하여 구축될 수 있거나(예컨대 US 4,186,567 참고), 예컨대 가변 중쇄 및 가변 경쇄를 포함하는 조합 라이브러리를 선별함으로써 수득될 수 있다(예컨대 맥캐이퍼티(McCafferty)의 US 5,969,108 참고).
특정 양상에서, 본 발명의 항원 결합 분자에 포함된 관련 표적에 특이적으로 결합가능한 항원 결합 도메인(예컨대 Fab 단편 또는 scFv)은, 예컨대 WO 2012/020006(친화도 성숙에 관한 실시예 참고) 또는 US 2004/0132066에 개시된 방법에 따라 강화된 결합 친화도를 갖도록 변형된다. 특이적 항원 결정인자에 결합하는 본 발명의 항원 결합 분자의 능력은 ELISA 또는 당업자에게 친숙한 기타 기법, 예컨대 SPR 기법(문헌[Liljeblad, et al., Glyco J 17, 323-329 (2000)]), 및 종래의 결합 분석(문헌[Heeley, Endocr Res 28, 217-229 (2002)])을 통해 측정될 수 있다. 경쟁 분석은 특정 항원에 대해 참조 항체와 경쟁하는 항원 결합 분자를 확인하는데 사용된다. 특정 양태에서, 이러한 경쟁 항원 결합 분자는 참조 항원 결합 분자에 의해 결합되는 동일한 에피토프(예컨대 선형 또는 입체구조 에피토프)에 결합한다. 항원 결합 분자가 결합하는 에피토프를 맵핑하는 상세한 예시 방법은 문헌[Morris (1996) "Epitope Mapping Protocols", in Methods in Molecular Biology vol. 66 (Humana Press, Totowa, NJ)]에 제시되어 있다. 예시적인 경쟁 분석에서, 부동화된 항원은 항원에 결합하는 제1 표지된 항원 결합 분자, 및 항원에 대한 결합에 대해 제1 항원 결합 분자와 경쟁하는 능력이 시험되는 제2 비표지된 항원 결합 분자를 포함하는 용액에서 항온배양된다. 제1 항원 결합 분자는 하이브리도마 상청액에 존재할 수 있다. 대조군으로서, 부동화된 항원은 제1 표지된 항원 결합 분자를 포함하되 제2 비표지된 항원 결합 분자는 포함하지 않는 용액에서 항온배양된다. 항원에 대한 제1 항체의 결합에 허용되는 조건하에 항온배양 후, 과량의 미결합 항체가 제거되고, 부동화된 항원과 회합되지 않은 표지의 양이 측정된다. 시험 샘플에서, 부동화된 항원과 회합된 표지의 양이 실질적으로 감소된 경우, 이는 제2 항원 결합 분자가 항원 결합에 대해 제1 항원 결합 분자와 경쟁함을 의미한다. 문헌[Harlow and Lane (1988) Antibodies: A Laboratory Manual ch.14 (Cold Spring Harbor Laboratory, Cold Spring Harbor, NY)]을 참고한다.
본원에 기재된 바로 제조된 이중특이성 항체는 당업계에 공지되어 있는 기법, 예컨대 고성능 액체 크로마토그래피, 이온 결합 크로마토그래피, 젤 전기영동, 친화도 크로마토그래피 및 크기 배제 크로마토그래피 등에 의해 정제될 수 있다. 특정 단백질을 정제하는데 사용되는 실질적인 조건은 부분적으로는 순전하, 소수성 및 친수성과 같은 요인들에 의존할 것이고, 이는 당업자에게 명백하다. 친화도 크로마토그래피 정제의 경우, 항체, 리간드, 수용체 또는 항원이 이중특이성 항원 결합 분자가 결합하도록 사용될 수 있다. 예컨대, 본 발명의 융합 단백질의 친화도 크로마토그래피의 경우, 단백질 A 또는 단백질 G를 갖는 기질이 사용될 수 있다. 서열 단백질 A 또는 G 친화도 크로마토그래피 및 크기 배제 크로마토그래피가 하기 실시예에 기재된 바와 같이 항원 결합 분자를 본질적으로 단리하는데 사용될 수 있다. 이중특이성 항원 결합 분자 또는 이의 단편의 정제는 당업계에 주지되어 있는 임의의 다양한 방법, 예컨대 젤 전기영동 및 고압 액체 크로마토그래피 등에 의해 측정될 수 있다. 예컨대, 실시예에 기재된 바와 같이, 발현된 이중특이성 항원 결합 분자가 환원성 및 비환원성 SDS-PAGE에 의해 완전하고 적절히 조립된 것으로 나타났다.
또한, 본 발명은 본 발명의 방법에 의해 제조되는 이중특이성 항체를 포괄한다.
분석
본원에 제시되는 이중특이성 항원 결합 분자는 당업계에 공지되어 있는 다양한 분석에 의해 이의 물리적/화학직 특성 및/또는 생체활성에 대해 확인되거나 선별되거나 특성규명될 수 있다.
1. 친화도 분석
OX40 또는 FAP에 대해 본원에 제시되는 이중특이성 항원 결합 분자의 친화도는 표준 계기측정, 예컨대 비아코어 계기(지이 헬스케어), 및 예컨대 재조합 발현에 의해 수득될 수 있는 수용체 또는 표적 단백질을 사용하여 SPR에 의해 하기 실시예에 제시된 방법에 따라 측정될 수 있다. 결합 친화도 측정을 위한 구체적인 설명적 및 예시적 양태는 하기 실시예 3에 기재되어 있다. 하나의 양상에 따라, Kd는 비아코어(등록상표) T200 장치(지이 헬스케어)를 사용하여 25℃에서 SPR에 의해 측정된다.
2. 결합 분석 및 기타 분석
상응하는 OX40 및/또는 FAP 발현 세포에 대한 본원에 제시되는 이중특이성 항원 결합 분자의 결합은 특정 수용체 또는 표적 항원을 발현하는 세포를 사용하여, 예컨대 FACS에 의해 평가될 수 있다. 하나의 양상에서, OX40을 발현하는 신선한 PMBC가 결합 분석에 사용된다. 이러한 세포는 단리 직후(미접촉 PMBC) 또는 자극 후(활성화된 PMBC) 사용된다. OX40에 대한 결합을 측정하기 위한 구체적인 설명적 및 예시적 양태는 하기 실시예 4.1에 기재되어 있다.
추가의 양상에서, FAP를 발현하는 암 세포계가 FAP에 대한 이중특이성 항체의 결합을 확인하는데 사용되었다(하기 실시예 4.2 참고).
또 다른 양상에서, 경쟁 분석이 FAP 또는 OX40에 결합하는 특이성 항체 또는 항원 결합 분자와 경쟁하는 항원 결합 분자를 확인하는데 사용될 수 있다. 특정 양태에서, 이러한 경쟁 항체는 특이성 항-FAP 항체 또는 특이성 항-OX40 항체에 의해 결합되는 동일한 에피토프(예컨대 선형 또는 입체구조 에피토프)에 결합한다. 항체가 결합하는 에피토프를 맵핑하는 상세한 예시 방법은 문헌[Morris (1996) "Epitope Mapping Protocols", in Methods in Molecular Biology vol. 66 (Humana Press, Totowa, NJ)]에 제시되어 있다.
3. 활성 분석
하나의 양상에서, 분석은 생체활성을 갖는 FAP 및 OX40에 결합하는 이중특이성 항원 결합 분자를 확인하는데 제시된다. 생체활성은, 예컨대 OX40을 발현하는 세포에서 OX40을 통한 작용성 신호전달을 포함할 수 있다. 시험관내에서 이러한 생체활성을 가져 분석에 의해 확인되는 이중특이성 항원 결합 분자도 제시된다. 특히, FAP를 발현하는 종양세포와 공동배양되고 인간 OX40을 발현하는 헬라(Hela) 세포에서 NFκB 활성화를 검출하는 리포터 세포 분석이 제시된다(예컨대 하기 실시예 5.1 참고).
또 다른 양상에서, 분석은 생체활성을 갖는 FAP 및 4-1BB에 결합하는 이중특이성 항원 결합 분자를 확인하는데 제시된다. 특히, 리포터 세포계 Jukrat-hu4-1BB-NFκB-luc2를 발현하는 인간 4-1BB 및 NFκB-루시퍼라제 리포터 유전자에서의 NFκB 활성호를 검출하는 리포터 세포 분석이 제시된다(예컨대 하기 실시예 7.2 참고).
또 다른 양상에서, 분석은 생체활성을 갖는 FAP 및 CD40에 결합하는 이중특이성 항원 결합 분자를 확인하는데 제시된다. 특히, 항원으로서 FAP-코팅된 다이나비드(등록상표)를 사용하여 FAP 표적화된 항-인간 CD40 결합 분자에 의한 인간 B 세포의 활성화를 측정하는 방법이 제시된다(예컨대 하기 실시예 10.1 참고).
특정 양상에서, 본 발명의 이중특이성 항원 결합 분자는 이러한 생체활성에 시험된다. 본 발명의 분자의 생채활성을 검출하기 위한 분석은 하기 실시예 5에 기재되어 있다. 또한, 세포 용해(예컨대 LDH 방출의 측정에 의함), 유도되는 세포자연사 역동학(예컨대 카스파제 3/7 활성의 측정에 의함) 또는 세포자연사(예컨대 투넬(TUNEL) 분석을 사용함)를 검출하기 위한 분석은 당업계에 주지되어 있다. 또한, 이러한 복합체의 생체활성은 다양한 림프구 부분집합, 예컨대 NK 세포, NKT 세포 또는 γδT 세포의 생존, 증식 및 림포카인 분비에 대한 이의 효과를 평가하거나, 표현형 및 항원 제시 세포, 예컨대 수지상세포, 단핵구/대식세포 또는 B 세포의 기능을 조절하는 이의 능력을 평가함으로써 측정될 수 있다.
약학 조성물, 제형 및 투여 경로
추가의 양상에서, 본 발명은, 예컨대 임의의 하기 치료 방법에 사용하기 위한 본원에 제시된 임의의 이중특이성 항체를 포함하는 약학 조성물을 제시한다. 하나의 양태에서, 약학 조성물은 본원에 제시된 임의의 이중특이성 항체 및 하나 이상의 약학적으로 허용되는 부형제를 포함한다. 또 다른 양태에서, 약학 조성물은 본원에 제시된 임의의 이중특이성 항체 및 하나 이상의 추가 치료제, 예컨대 후술되는 치료제를 포함한다.
본 발명의 약학 조성물은 약학적으로 허용되는 부형제에 용해되거나 분산된 치료 효과량의 하나 이상의 이중특이성 항체를 포함한다. 어구 "약학 또는 약리학적으로 허용되는"은 동물, 예컨대 인간에게 적절히 투여될 때 사용되는 투여량 및 농도로 수용자에게 일반적으로 비독성인 분자 자체 및 조성물을 지칭한다. 하나 이상의 이중특이성 항체 및 임의적으로 추가의 활성 성분을 함유하는 약학 조성물의 제조는 본원에 참조로 혼입되는 문헌[Remington's Pharmaceutical Sciences, 18th Ed. Mack Printing Company, 1990]에 예시된 바와 같이 본 개시에 비추어 당업자에게 공지될 것이다. 특히, 조성물은 동결건조 제형 또는 수용액이다. 본원에 사용된 "약학적으로 허용되는 부형제"는 임의 및 모든 용매, 완충액, 분산 매질, 코팅, 계면활성제, 항산화제, 보존제(예컨대 항박테리아제 및 항진균제), 등장성 제제, 염, 안정화제 및 이의 조합을 포함하고, 이는 당업자에게 공지되어 있을 것이다.
비경구적 조성물은 주사, 예컨대 피하, 내피, 병변내, 정맥내, 동맥내, 근육 내, 척수강내 또는 복강내 주사에 의해 투여되도록 설계된 것을 포함한다. 주사의 경우, 본 발명의 이중특이성 항체는 바람직하게는 생리적으로 호환가능한 완충액, 예컨대 행크액(Hanks' solution), 링거액 또는 생리식염 완충액 중에 제형화될 수 있다. 용액은 제형성 제제, 예컨대 현탁제, 안정화제 및/또는 분산제를 함유할 수 있다. 다르게는, 융합 단백질은 적합한 운반체, 예컨대 멸균 발열원-미함유 수와의 구성을 위한 사용전 분말 형태일 수 있다. 멸균 주사 용액은 본 발명의 융합 단백질을 필요에 따라 하기 열거된 다양한 기타 성분을 함유하는 적절한 용매 중 필요량 혼입함으로써 제조된다. 멸균성은, 예컨대 멸균 여과막을 통해 용이하게 성취될 수 있다. 일반적으로, 분산은 다양한 멸균된 활성 성분을 염기성 분산 매질 및/또는 기타 성분을 함유하는 멸균 운반체에 혼입함으로써 제조된다. 멸균 주사 용액의 제조를 위한 멸균 분말의 경우, 제조의 바람직한 방법은 진공건조 또는 동결건조 기법이고, 이는 활성 성분, 및 이의 미리 멸균여과된 액상 매질로부터의 임의의 추가 목적 성분의 분말을 생성한다. 액상 매질은 필요에 따라 적합하게 완충되어야 하고, 충분한 식염수 또는 글루코스에 의한 주사 전에 먼저 등장성으로 만들어야 한다. 조성물은 제조 및 저장 조건하에 안정해야 하고, 미생물, 예컨대 박테리아 및 진균의 오염 작용에 대항하여 보존되어야 한다. 내독소 오염은 안전수준, 예컨대 0.5 ng/ml 단백질 미만으로 최소로 유지되어야 함이 이해될 것이다. 적합한 약학적으로 허용되는 부형제는 비한정적으로 완충제, 예컨대, 포스페이트, 시트레이트 및 기타 유기산; 항산화제, 예컨대 아스코르브산 및 메티오닌; 보존제(예컨대 옥타데실다이메틸 암모늄 클로라이드, 헥사메토늄 클로라이드 벤잘코늄 클로라이드, 페놀, 부틸 알코올 또는 벤질 알코올, 알킬 파라벤(예컨대 메틸 파라벤 또는 프로필 파라벤), 카테콜, 레소르시놀, 사이클로헥산올, 3-펜탄올 및 m-크레졸); 저분자량(약 10개 잔기 미만) 폴리펩티드; 단백질, 예컨대 혈청 알부민, 젤라틴 또는 면역글로불린; 친수성 중합체, 예컨대 폴리비닐피롤리돈; 아미노산, 예컨대 글리신, 글루타민, 아스파라긴, 히스티딘, 아르기닌 또는 리신; 단당류, 이당류 및 기타 탄수화물(예컨대 글루코스, 만노스 또는 덱스트린); 킬레이트화제, 예컨대 EDTA; 당, 예컨대 수크로스, 만니톨, 트레할로스 또는 솔비톨; 상대이온을 형성하는 염, 예컨대 나트륨; 금속 착물(예컨대 Zn-단백질 착물); 및/또는 비이온성 계면활성제, 예컨대 폴리에틸렌 글리콜(PEG)을 포함한다. 수성 주사 현탁액은 상기 현탁액의 점도를 증가시키는 화합물, 예컨대 나트륨 카복시메틸 셀루로스, 솔비톨 또는 덱스트란 등을 함유할 수 있다. 임의적으로, 현탁액은 고도로 농축된 용액을 제조할 수 있도록 화합물의 용해도를 증가시키는 적합한 안정화제 또는 제제도 함유할 수 있다. 또한, 활성 화합물의 현탁액은 필요에 따라 유성 주사 현탁액으로서 제조될 수 있다. 적합한 친지성 용매 또는 운반체는 지방 오일, 예컨대 참깨 오일, 또는 합성 지방산 에스터, 예컨대 에틸 클리트(cleat) 또는 트라이글리세리드, 또는 리포솜을 포함한다.
활성 성분은, 예컨대 코아세르베이션(coacervation) 기법 또는 계면 중합에 의해 마이크로캡슐(예컨대 하이드록시메틸 셀룰로스 또는 젤라틴-마이크로캡슐 및 폴리-(메틸메트아크릴레이트) 마이크로캡슐), 콜로이드 약물 전달 시스템(예컨대 리포솜, 알부민 미소구체, 마이크로 유화액, 나노 입자 및 나노캡슐) 또는 매크로 유화액(macroemulsion)에 내포될 수 있다. 이러한 기법은 문헌[Remington's Pharmaceutical Sciences (18th Ed. Mack Printing Company, 1990)]에 기재되어 있다. 지속방출 제제가 제조될 수 있다. 지속방출 제제의 적합한 예는 폴리펩티드를 함유하는 고체 소수성 중합체의 반투과성 기질이고, 상기 기질은 성형된 물품, 예컨대 필름 또는 마이크로캡슐의 형태이다. 특정 양태에서, 주사 조성물의 연장된 흡수가 흡수를 지연하는 제제, 예컨대 알루미늄 모노스테아레이트, 젤라틴 또는 이의 조합의 조성물에서의 사용에 의해 성취될 수 있다.
본원에서 예시적인 약학적으로 허용되는 부형제는 장용성 약물 분산제, 예컨대 가용성 중립-활성 히알루로니다제 당단백질(sHASEGP), 예컨대 인간 가용성 PH-20 히알루로니다제 당단백질, 예컨대 rHuPH20(히알넥스(HYLENEX: 등록상표), 백스터 인터네이셔널 인코포레이티드(Baxter International, Inc.))을 추가로 포함한다. 특정한 예시적인 sHASEGPs, 예컨대 rHuPH20 및 이의 사용 방법은 US 2005/0260186 및 US 2006/0104968에 기재되어 있다. 하나의 양상에서, sHASEGP는 하나 이상의 추가적인 글리코스아미노글리카나제, 예컨대 콘드로이티나제와 조합된다.
예시적인 동결건조 항체 제형은 US 6,267,958에 기재되어 있다. 수성 항체 제형은 US 6,171,586 및 WO 2006/044908에 기재되어 있는 것을 포함하고, 후자의 제형은 히스티딘-아세테이트 완충제를 포함한다.
전술한 조성물 이외에도, 융합 단백질은 데포 제제(depot preparation)로서도 제형화될 수 있다. 이러한 장기 작용성 제형은 이식(예컨대 피하 또는 근육내) 또는 근육내 주사에 의해 투여될 수 있다. 따라서, 예컨대 융합 단백질은 적합한 중합체 물질 또는 소수성 물질(예컨대 허용되는 오일 중 유화액) 또는 이온 교환 수지에 의해 또는 거의 불용성인 유도체, 예컨대 거의 불용성인 염으로서 제형화될 수 잇다.
본 발명의 융합 단백질을 포함하는 약학 조성물은 통상적인 혼합, 용해, 유화, 캡슐화, 내포 또는 동결건조 방법에 의해 제조될 수 있다. 약학 조성물은 단백질을 가공하여 약학적으로 사용될 수 있는 제제를 제조함을 용이하게 하는 하나 이상의 생리적으로 허용되는 담체, 희석제, 부형제 또는 보조제를 사용하여 통상적인 방법으로 제형화될 수 있다. 적절한 제형은 선택되는 투여 경로에 의존한다.
이중특이성 항체는 유리 산, 염기, 중성 또는 염 형태의 조성물로 제형화될 수 있다. 약학적으로 허용되는 염는 유리 산 또는 염기의 생체활성을 실질적으로 유지하는 염이다. 이는 산 부가 염, 예컨대 단백성 조성의 유리 아미노 기에 의해 형성된 것, 또는 무기산, 예컨대 염산 또는 인산, 또는 유기산, 예컨대 아세트산, 옥살산, 타르타르산 또는 만델산에 의해 형성된 것을 포함한다. 또한, 유리 카복시 기에 의해 형성된 염은 무기염기, 예컨대 나트륨, 칼륨, 암모늄, 칼슘 또는 제이철 하이드록사이드; 또는 무기염기, 예컨대 이소프로필아민, 트라이메틸아민, 히스티딘 또는 프로카인으로부터 유도될 수 있다. 약학적 염은 상응하는 유리 염기 형태보다 수성 및 기타 양성자성 용매에 더 가용성인 경향이 있다.
본원의 조성물은 바람직하게는 서로 유해 효과를 주지 않는 상보적 활성을 갖는 것으로 처리되는 특정 징후에 필요한 하나 초과의 활성 성분도 함유할 수 있다. 이러한 활성 성분은 의도되는 목적에 효과적인 양의 조합으로 적합하게 존재한다.
체내 투여에 사용되는 제형은 일반적으로 멸균성이다. 멸균성은, 예컨대 멸균 여과막을 통해 용이하게 성취될 수 있다.
치료 방법 및 조성물
본원에 제시되는 임의의 이중특이성 항체가 치료 방법에 사용될 수 있다. 치료 방법에서의 사용의 경우, 본 발명의 항원 결합 분자는 우수한 의료적 실시와 조화되도록 제형화되고 투여량이 정해지고 투여될 수 있다. 이러한 맥락에서 고려되는 요인은 치료되는 특정 질환, 치료되는 특정 포유동물, 개별 환자의 임상적 병태, 질환의 원인, 제제의 전달 부위, 투여 방법 및 의료 실시자들에게 공지되어 있는 기타 요인들을 포함한다.
하나의 양상에서, 본 발명의 이중특이성 항체는 약제로서 사용되도록 제시된다. 추가 양상에서, 본 발명의 이중특이성 항원 결합 분자는 질환 치료, 특히 암 치료에 사용되도록 제시된다. 특정 양태에서, 본 발명의 이중특이성 항체는 치료 방법에 사용되도록 제시된다. 하나의 양태에서, 본 발명은 치료를 필요로 하는 개체의 질환을 치료하기 위한 본원에 기재된 이중특이성 항체를 제시한다. 특정 양태에서, 본 발명은 치료 효과량의 이중특이성 항원 결합 분자를 개체에게 투여하는 단계를 포함하는 질환을 앓는 개체의 지료 방법에 사용하기 위한 이중특이성 항체를 제시한다. 특정 양태에서, 치료되는 질환은 암이다. 특정 양태에서, 치료되는 질환은 증식성 질환, 특히 암이다. 암의 예는 방광암, 뇌암, 두경부암, 췌장암, 폐암, 유방암, 난소암, 자궁암, 자궁 경부암, 자궁내막암, 식도암, 결장암, 대장암, 직장암, 위암, 전립선암, 혈액암, 피부암, 편평세포 암종, 골암 및 신장암을 포함한다. 본 발명의 이중 특이성 항원 결합 분자를 사용하여 치료될 수 있는 다른 세포 증식 질환에는 복부, 뼈, 유방, 소화 시스템, 간, 췌장, 복막, 내분비선(부신, 부갑상선, 뇌하수체, 고환, 난소, 흉선, 갑상선), 안구, 두경부, 신경계(중추 및 말초), 림프계, 골반, 피부, 연조직, 비장, 흉부 및 비뇨 생식계를 포함한다. 또한, 전암성 병태 또는 병반 및 암 전이가 포함된다. 특정 양태에서, 암음 신장세포암, 피부암, 폐암, 대장암, 유방암, 뇌암 및 두경부암으로 이루어진 군으로부터 선택된다. 치료를 필요로 하는 대상 또는 개체는 전형적으로는 포유동물, 보다 구체적으로는 인간이다.
또한, 세포독성 T 세포 활성을 상향조절하거나 연장하는데 사용하기 위한 본 발명의 이중특이성 항체 또는 본 발명의 약학 조성물이 포함된다.
추가의 양상에서, 본 발명은 본 발명의 이중특이성 항체의 치료를 필요로 하는 개체의 질환의 치료를 위한 약제의 생산 및 제조에서의 용도를 제시한다. 특정 양상에서, 약제는 치료 효과량의 약제를 질환을 앓는 개체에게 투여하는 단계를 포함하는 질환 치료 방법에서 사용된다. 특정 양태에서, 치료되는 질환은 증식성 질환, 특히 암이다. 암의 예는 방광암, 뇌암, 두경부암, 췌장암, 폐암, 유방암, 난소암, 자궁암, 자궁 경부암, 자궁내막암, 식도암, 결장암, 대장암, 직장암, 위암, 전립선암, 혈액암, 피부암, 편평세포 암종, 골암 및 신장암을 포함한다. 본 발명의 이중 특이성 항원 결합 분자를 사용하여 치료될 수 있는 다른 세포 증식 질환에는 복부, 뼈, 유방, 소화 시스템, 간, 췌장, 복막, 내분비선(부신, 부갑상선, 뇌하수체, 고환, 난소, 흉선, 갑상선), 안구, 두경부, 신경계(중추 및 말초), 림프계, 골반, 피부, 연조직, 비장, 흉부 및 비뇨 생식계를 포함한다. 또한, 전암성 병태 또는 병반 및 암 전이가 포함된다. 특정 양태에서, 암음 신장세포암, 피부암, 폐암, 대장암, 유방암, 뇌암 및 두경부암으로 이루어진 군으로부터 선택된다. 당업자는 다수의 경우에서 이중특이성 항원 결합 분자가 치유를 제공함이 아니라 단지 부분적 유익만을 제공할 수 있음을 용이하게 인지한다. 일부 양태에서, 일부 유익을 갖는 생리학적 변화도 치료 유익으로서 고려된다. 따라서, 일부 양태에서, 생리적 변화를 제공하는 이중특이성 항체의 양이 "효과량" 또는 "치료 효과량"이다. 임의의 상기 양태에서, 개체는 바람직하게는 포유동물, 바람직하게는 인간이다.
추가의 양상에서, 본 발명은 본원에 기재된 이중특이성 항체의 감염성 질환의 치료, 특히 바이러스 감염의 치료 또는 자가면역 질환의 치료, 예컨대 루푸스 질환의 치료를 위한 약제의 생산 또는 제조에서의 용도에 관한 것이다.
추가의 양상에서, 본 발명은 치료 효과량의 본 발명의 이중특이성 항원 결합 분자를 개체에게 투여하는 단계를 포함하는 상기 개체의 질환 치료 방법을 제시한다. 하나의 양태에서, 조성물은 약학적으로 허용되는 형태의 본 발명의 융합 단백질을 포함하여 상기 개체에게 투여된다. 특정 양태에서, 치료되는 질환은 증식성 질환이다. 특정 양태에서, 질환은 암이다. 특정 양태에서, 상기 방법은 치료되는 질환이 암인 경우 치료 효과량의 하나 이상의 추가의 치료제, 예컨대 항암제를 개체에게 투여하는 단계를 포함한다. 임의의 상기 양태에 따른 개체는 포유동물, 바람직하게는 인간일 수 있다.
질환의 예방 또는 치료를 위해, 본 발명의 이중특이성 항체의 적절한 투여량(단독으로 또는 하나 이상의 기타 추가 치료제와 조합으로 사용될 때)은 치료되는 질환의 유형, 투여 경로, 환자의 체중, 융합 단백질의 유형, 질환의 중증도 및 경과, 융합 단백질이 예방적 목적인지 또는 치료적 목적인지의 여부, 선행되었거나 동행되는 치료 중재, 환자의 임상적 병력 및 융합 단백질에 대한 반응, 및 주치의의 재량에 의존할 것이다. 실시자는 임의의 사건에서 개별 대상을 위한 활성 성분의 농도 및 적절한 투여량을 결정할 것이다. 다양한 투여 일정, 예컨대 비한정적으로 다양한 시점에 걸친 단회 또는 다회 투여, 볼러스(bolus) 투여 및 펄스 주입(pulse infusion)이 여기서 고려된다.
이중특이성 항체는 환자에게 1회 또는 일련의 치료에 걸쳐 환자에게 적합하게 투여된다. 질환의 유형 및 중증도에 따라, 약 1 μg/kg 내지 15 mg/kg(예컨대 0.1 mg/kg 내지 10 mg/k)의 항원 결합 분자가 하나 이상의 개별 투여 또는 연속 주입으로 환자에게 투여하는 투여량의 초기 후보가 될 것이다. 하나의 전형적인 일일 투여량은 전술한 요인에 따라 약 1 μg/kg 내지 100 mg/kg 이상일 수 있다. 몇일 이상에 걸친 반복 투여의 경우, 조건에 따라, 투여는 일반적으로 질환 증상의 목적 억제가 나타낼 때까지 지속될 것이다. 융합 단백질의 하나의 예시적인 투여량은 약 0.005 내지 약 10 mg/kg일 수 있다. 다른 예에서, 투여량은 투여양 약 1 μg/kg 체중, 약 5 μg/kg 체중, 약 10 μg/kg 체중, 약 50 μg/kg 체중, 약 100 μg/kg 체중, 약 200 μg/kg 체중, 약 350 μg/kg 체중, 약 500 μg/kg 체중, 약 1 mg/kg 체중, 약 5 mg/kg 체중, 약 10 mg/kg 체중, 약 50 mg/kg 체중, 약 100 mg/kg 체중, 약 200 mg/kg 체중, 약 350 mg/kg 체중 또는 약 500 mg/kg 체중으로부터 약 1000 mg/kg 체중 이상, 및 이에서 유도가능한 임의의 범위일 수 있다. 본원에 열거된 수치의 유도가능한 범위의 예에서, 약 5 체중 내지 약 100 mg/kg 체중 또는 약 5 μg/kg 체중 내지 500 mg/kg 체중 등이 전술한 수치를 기반으로 투여될 수 있다. 따라서, 약 0.5 mg/kg, 2.0 mg/kg, 5.0 mg/kg 또는 10 mg/kg(또는 이의 임의이 조합)의 하나 이상의 투여량이 환자에게 투여될 수 있다. 이러한 투여량은 단속적으로, 예컨대 매주마다 또는 매3주마다(예컨대 환자가 약 2개 내지 약 20개, 예컨대 약 6개 투여량의 이중특이성 항원 결합 분자를 투여받을 수 있도록) 투여될 수 있다. 초기의 높은 로딩 투여량에 이어서 하나 이상의 낮은 투여량이 투여될 수 있다. 그러나, 다른 투여량법도 유용할 수 있다. 상기 치료의 진전은 통상적인 기법 및 분석을 사용하여 용이하게 감시된다.
일반적으로, 본 발명의 이중특이성 항체는 목적되는 의도를 성취하는데 효과적인 양으로 사용될 것이다. 병태를 치료하거나 예방하는데 사용하기 위해 본 발명의 이중특이성 항원 결합 분자 또는 이의 약학 조성물은 치료 효과량으로 투여되거나 적용된다. 치료 효과량의 결정은 특히 본원에 제공된 상세한 개시에 비추어 당업자의 능력내에 있다.
전신성 투여를 위해, 치료 효과량의 투여량은 시험관내 분석, 예컨대 세포 배양물 분석으로부터 초기에 예측될 수 있다. 이어서, 동물 모델에서, 투여량은 세포 배양물에서 결정된 IC50 값을 포함하는 순환 농도 범위를 성취하도록 제형화될 수 있다. 이러한 정보는 인간에서 유용한 투여량을 보다 정확히 결정하는데 사용될 수 있다. 또한, 초기 투여량은 당업계에 주지되어 있는 기법을 사용하여 체내 데이터, 예컨대 동물 모델로부터 예측될 수 있다. 당업자는 동물 데이터를 근거로 하여 인간에 대한 투여를 용이하게 최적화할 수 있다. 투여량 및 간격은 치료 효과를 유지하는데 충분한 이중특이성 항원 결합 분자의 혈장 수준을 제공하도록 개별 조정될 수 있다. 주사에 의한 투여에 통상적인 환자 투여량은 약 0.1 내지 50 mg/kg/일, 전형적으로는 약 0.5 내지 1 mg/kg/일이다. 치료 효과 혈장 수준은 각각의 날에 다수의 투여량을 투여함으로써 성취될 수 있다. 혈장 수준은, 예컨대 HPLC에 의해 측정될 수 있다.
국소 투여 또는 선택성 흡수의 경우, 이중특이성 항원 결합 분자의 효과적인 국소 농도는 혈장 농도와는 관련이 없을 수 있다. 당업자는 과도한 실험 없이도 치료 효과적인 국소 투여량을 최적화할 수 있을 것이다.
일반적으로, 본원에 기재된 이중특이성 항체의 치료 효과 투여량은 실질적인 독성을 야기함 없이 치료 유익을 제공한다. 융합 단백질의 독성 및 치료 효능은 세포 배양물 또는 실험 동물에서의 표준적인 약학 절차에 의해 측정될 수 있다. 세포 배양물 분석 및 동물 연구가 LD50(집단의 50%에 치명적인 투여량) 및 ED50(집단의 50%에서 치료적으로 효과적인 투여량)을 측정하는데 사용될 수 있다. 독성 효과 대 치료 효과의 비가 치료 지수이고, 이는 비 LD50/ED50으로서 표현될 수 있다. 큰 치료 지수를 나타내는 이중특이성 항원 결합 분자가 바람직하다. 하나의 양태에서, 본 발명에 따른 이중특이성 항원 결합 분자는 높은 치료 지수를 나타낸다. 세포 배양물 분석 및 동물 연구로부터 수득된 데이터는 인간에서의 사용에 적합한 범위의 투여량을 제형화하는데 사용될 수 있다. 투여량은 바람직하게는 독성이 거의 또는 전혀 없이 ED50을 포함하는 순환 농도의 범위내에 있다. 투여량은 다양한 요인, 예컨대 사용되는 투여량 형태, 이용되는 투여 경로 및 대상의 병태 등에 따라 상기 범위 내에서 달라질 수 있다. 정확한 제형, 투여 경로 및 투여량은 환자의 상태에 비추어 개별 주치의에 의해 선택될 수 있다(예컨대 전체가 본원에 참조로 혼입되는 문헌[Fingl et al., 1975, in: The Pharmacological Basis of Therapeutics, Ch. 1, p. 1] 참고).
본 발명의 이중특이성 항원 결합 분자로 치료되는 환자의 주치의는 독성 및 기관 기능장애 등에 기인하여 어떻게 및 언제 투여를 종결, 정지 또는 조정할 지를 알 것이다. 반대로, 주치의는 (독성을 배제하고) 임상적 반응이 적합하지 않은 경우, 치료를 더 높은 수준으로 조정해야 함도 알 것이다. 관심 질환의 관리에 있어서 투여되는 투여량의 규모는 치료되는 병태의 중증도 및 투여 경로 등에 의해 달라질 것이다. 병태의 중증도는, 예컨대 부분적으로 표준 진단 평가 방법에 의해 평가될 수 있다. 또한, 투여량 및 예상 투여 빈도도 개별 환자의 연령, 체중 및 반응에 따라 달라질 것이다.
기타 제제 및 치료
본 발명의 이중특이성 항체는 치료에서 하나 이상의 기타 제제와의 조합으로 투여될 수 있다. 예컨대 본 발명의 이중특이성 항체는 하나 이상의 추가 치료제와 공동투여될 수 있다. 용어 "치료제"는 치료를 필요로 하는 개체의 증상 또는 질환을 치료하기 위해 투여될 수 있는 임의의 제제를 포함한다. 이러한 추가 제제는 치료되는 특정 징후에 적합한 임의의 활성 성분, 바람직하게는 서로 유해 효과를 주지 않는 상보적 활성을 갖는 것을 포함할 수 있다. 특정 양태에서, 추가 치료제는 또 다른 항암제이다.
이러한 기타 제제는 의도되는 목적에 효과적인 양의 조합으로 존재한다. 이러한 기타 제제의 효과량은 사용되는 융합 단백질의 양, 장애 또는 치료의 유형, 및 상기 논의된 기타 요인에 의존한다. 일반적으로, 이중특이성 항원 결합 분자는 본원에 기재된 것과 동일한 투여량 및 투여 경로, 또는 본원에 기재된 투여량의 약 1 내지 99%, 또는 경험상으로/임상적으로 적절하다고 판단되는 임의의 투여량 및 임의의 경로로 사용된다.
상기 제시된 이러한 조합 치료는 조합된 투여(2개 이상의 치료제가 동일하거나 별개의 조성물에 포함됨) 및 개별 투여(이러한 경우, 본 발명의 이중특이성 항원 결합 분자가 추가의 치료제 및/또는 보조약의 투여 전, 동시 및/또는 후 수행될 수 있음)를 포함한다.
생산 물품
본 발명의 또 다른 양상에서, 전술한 질환의 치료, 예방 및/또는 진단에 유용한 물질을 함유하는 생산 물품이 제시된다. 생산 물품은 용기, 및 상기 용기에 있거나 이와 회합된 라벨 또는 포장 삽입물을 포함한다. 적합한 용기는, 예컨대 병, 바이알, 주사기 및 정맥내(IV) 용액낭 등을 포함한다. 용기는 다양한 물질, 예컨대 유리 또는 플라스틱으로부터 제조될 수 있다. 용기는 병태를 치료, 예방 및/또는 진단하는데 효과적인 조성물 그 자체 또는 또 다른 조성물과 조합된 조성물을 보유하고, 멸균 접근 포트를 가질 수 있다(예컨대 용기는 피하 주사 바늘로 관통되는 마개를 갖는 정맥내 용액낭 또는 바이알일 수 있음). 조성물 중 하나 이상의 활성 제제는 본원에 기재된 이중특이성 항체이다.
라벨 또는 포장 삽입물은 조성물이 선택 병태를 치료하는데 사용됨을 지시한다. 또한, 생산 물품은 (a) 조성물이 담긴 제1 용기(상기 조성물은 본 발명의 이중특이성 항체를 포함함); 및 (b) 조성물이 담긴 제2 용기(상기 조성물은 추가의 세포독성제 또는 치료제를 포함함)를 포함할 수 있다. 본 발명의 이러한 양태에서 생산 물품은 상기 조성물이 특정 병태를 치료하는데 사용될 수 있음을 지시하는 포장 삽입물을 추가로 포함할 수 있다.
다르게는 또는 추가적으로, 생산 물품은 약학적으로 허용되는 완충액(예컨대 주사용 정균수(BWFI), 포스페이트-완충된 식염수, 링거액 및 덱스트로스 용액을 포함하는 제2(또는 제3) 용기를 추가로 포함할 수 있다. 이는 또한 시판 단계 및 사용자 단계로부터의 바람직한 기타 물질, 예컨대 기타 완충액, 희석제, 충전제, 바늘 및 주사기를 추가로 포함할 수 있다.
[표 B]
Figure pct00002
Figure pct00003
Figure pct00004
Figure pct00005
Figure pct00006
Figure pct00007
Figure pct00008
Figure pct00009
Figure pct00010
Figure pct00011
인간 면역글로불린 경쇄 및 중쇄의 뉴클레오티드에 관한 정보는 문헌[Kabat, E.A., et al., Sequences of Proteins of Immunological Interest, 5th ed., Public Health Service, National Institutes of Health, Bethesda, MD (1991)]에 제시되어 있다. 항체 쇄의 아미노산은 상기 정의된 카밧에 따른 EU 번호부여 체계(문헌[Kabat, E.A., et al., Sequences of Proteins of Immunological Interest, 5th ed., Public Health Service, National Institutes of Health, Bethesda, MD (1991)])에 따라 번호부여되고 지칭된다.
실시예
본 발명의 방법 및 조성물의 실시예게 하기 기재된다. 상기 제시된 일반적인 설명을 전제로 다양한 다른 양태가 실시될 수 있다.
재조합 DNA 기법
문헌[Sambrook et al., Molecular cloning: A laboratory manual; Cold Spring Harbor Laboratory Press, Cold Spring Harbor, New York, 1989]에 기재된 표준적인 방법을 DNA 조작에 사용하였다. 분자 생물학적 시약을 제조자의 지침에 따라 사용하였다. 인간 면역 글로불린 경쇄 및 중쇄의 뉴클레오티드 서열에 관한 일반적인 정보는 문헌[Kabat, E.A. et al., (1991) Sequences of Proteins of Immunological Interest, Fifth Ed., NIH Publication No 91-3242]에 제시되어 있다.
DNA 서열분석
DNA 서열을 이중 가닥 서열분석에 의해 결정하였따.
합성법
목적 유전자 분절을 진아트 아게(Geneart AG)(독일 레겐스부르크)에서 자동화된 유전자 합성에 의해 합성 올리고뉴클레오티드로부터 화학적 합성법으로 제조하였다. 증식/증폭을 위해, 합성된 유전자 단편을 E. Coli 플라스미드에 클로닝하였다. 서브클로닝된 유전자 단편의 DNA 서열을 DNA 서열분석에 의해 확인하였다. 다르게는, 짧은 합성 DNA 단편을 화학적으로 합성된 올리고뉴클레오티드를 어닐링(annealing)함으로써 또는 PCR을 통해 조립하였다. 상기 올리고뉴클레오티드는 메타바이온 게엠베하(Metabion GmbH)(독일 플라네크-마틴스그리드)가 제조하였다.
세포 배양 기법
문헌[Current Protocols in Cell Biology (2000), Bonifacino, J.S., Dasso, M., Harford, J.B., Lippincott-Schwartz, J. and Yamada, K.M.(Eds.), John Wiley & Sons, Inc]에 기재되어 있는 표준적인 세포 배양 기법을 사용하였다.
시약
달리 언급이 없는 경우, 모든 화합물, 항체 및 키트를 제조자의 프로토콜레 따라 제시되는데로 사용하였다.
실시예 1
이중특이성 컨터체의 생성
1.1 이중특이성 컨터체를 위한 발현 플라스미드의 구축
본원에 보고된 이중특이성 컨터체의 발현을 위해 하기 기능 요소를 포함하는 전사 단위를 사용하였다:
- 인트론 A를 포함하는 인간 거대세포바이러스(P-CMV)로부터의 전초기(immediate early) 증폭자 및 프로모터;
- 인간 중쇄 면역글로불린 5'-미번역 영역(5'UTR);
- 뮤린 면역글로불린 중쇄 신호 서열;
- 각각의 고리 융합 폴리펩티드를 암호화하는 핵산; 및
- 소 성장 호르몬 폴리아데닐화 서열(BGH pA).
발현되어야 할 목적 유전자를 포함하는 발현 단위/카세트 이외에도, 기본/표준 포유동물 발현 플라스미드는
- E. Coli에서 상기 플라스미드의 복제를 가능하게 하는 벡터 pUC18로부터의 복제 원점; 및
- E. Coli에서 앰피실린 내성을 부여하는 베타-락타마제 유전자
를 함유 함유하였다.
1.2 이중특이성 컨터체의 발현
이중특이성 항원 결합 분자의 일과성 발현을 현탁액-적응된 HEK293F(프리스타일(FreeStyle) 293-F 세포; 인비트로젠(Invitrogen))에서 시약 293-프리(free)(노바젠(Novagen))를 사용하여 수행하였다.
세포를 125 mL 진탕 플라스크에서 해동(37℃, 7% CO2, 85% 습도 및 135 rpm에서 항온배양/진탕)한 후 희석을 사용하여 배양하였다. 세포를 250 mL 부피로 3x10⁵ 세포/mL로 확대하였다. 3일 후, 세포를 나누고 1 L 진탕 플라스크에서 250 mL로 7x10⁵ 세포/mL의 밀도로 새로 파종하였다. 형질 감염은 24시간 후 약 1.4 내지 2.0x10⁶ 세포/mL가 되었다.
형질감염 전 250 μg의 플라스미드 DNA를 사전 희석된(물 중탕; 37℃) 옵티-멤(Opti-MEM)(기브코(Gibco))에 의해 10 mL의 최종 부피로 희석하였다. 상기 용액을 온화하게 혼합하고 실온에서 5분 이하의 시간 동안 항온배양하였다. 이어서, 333.3 μL의 293-프리 형질감염 시약을 DNA-옵티-멤 용액에 첨가하였다. 이어서, 용액을 온화하게 혼합하고 실온에서 15 내지 20분 동안 항온배양하였다. 총 부피의 혼합물을 1 L 진탕 플라스크에 250 mL의 HEK-세포-배양-부피로 첨가하였다.
7℃, 7% CO2, 85% 습도 및 135 rpm에서 6일 또는 7일 동안 항온배양/진탕하였다.
2,000 rpm 및 4℃에서 10분 동안의 제1 원심분리에 의해 상청액을 수확하였다. 이어서, 상기 상청액을 새로운 원심분리 플라스크로 옮기고 4,000 rpm에서 20분 동안 제2 원심분리하였다. 이어서, 세포-미함유-상청액을 0.22 μm 병-상단(bottle-top)-필터를 통해 여과하고 냉동고(-20℃)에 저장하였다.
1.3 이중특이성 컨터체의 정제
이중특이성 항원 결합 분자를 함유하는 배양 상청액을 여과하고 2개의 칸나비노이드 수용체 2 단계에 의해 정제하였다. 항체를 하이트렙 맙셀렉트슈어(HiTrap MabSelectSuRe)(지이 헬스케어)와 PBS(1 mM KH2PO4, 10 mM Na2HPO4, 137 mM NaCl, 2.7 mM KCl)를 사용한 친화도 크로마토그래피로 포획하였다. 미결합 단백질을 평형 완충액으로 세척함으로써 제거하고, 항원 결합 분자를 50 mM 시트레이트 완충액(pH 2.8)으로 복구시킨 직후 트리스(Tris)-염기(pH 9.0)에 의해 pH 6.0으로 중화시켰다. 슈퍼덱스 200(Superdex 200: 상표명)(지이 헬스케어)에서 크기 배제 크로마토그래피를 제2 정제 단계로서 사용하였다. 크기 배제 크로마토그래피를 20 mM 히스티딘 완충액(0.14 M NaCl, pH 6.0)에서 수행하였다. 이중특이성 항원 결합 분자를 함유하는 용액을 바이오맥스(Biomax)-SK 막(미국 메사추세츠주 빌러리카 소재의 밀리포어(Millipore))이 장착된 울트라프리(Ultrafree)-CL 원심분리 필터 장치에 의해 농축하고 -80℃에서 저장하였다.
1.4 이중특이성 컨터체의 질량 스펙트럼 분석
펩티드 N-탈당쇄효소(PNGase) F(14.3 U/μL; 나트륨 포스페이트, EDTA 및 글리세롤 중 용액)를 로슈 다이그노스틱스 게엠베하(Roche Diagnostics GmbH )로부터 입수하였다. IgG 항체의 경첩부의 단백질분해효소 특이적 절단부를 동결건조물로부터 새롭게 재구성한 후 소화시켰다.
펩티드 N- 탈당쇄효소 F에 의한 효소 탈당화
50 μg의 항원 결합 분자를 10 mM 나트륨 포스페이트 완충액(pH 7.1)에 의해 0.6 mg/mL의 최종 농도로 희석시키고 1μL의 펩티드 N-탈당쇄효소로 37℃에서 16시간 동알 탈당화시켰다.
효소 절단
탈당화된 샘플을 200 mM 트리스 완충액(pH 8.0)으로 0.5 mg/mL의 최종 농도로 희석시킨 후 IgG 특이성 단백질분해효소로 37℃에서 1시간 동안 소화시켰다.
ELI- QTOF 질량 스펙트럼 분석
샘플을 세파덱스(Sephadex) G25 컬럼(크론랩(Kronlab), 5x250 mm, TAC05/250G0-SR)에서 40%(v/v) 아세토니트릴과 2%(v/v) 포름산을 사용하여 탈염하였다. 총 질량을 트라이버사 나노메이트(TriVersa NanoMate) 공급원(아드비온(Advion))이 장착된 맥시스(maXis) 4G UHR-QTOF MS(브루커 달터닉(Bruker Daltonik))에서 ESI-QTOF MS를 통해 측정하였다. 나트륨 요오다이드를 사용하여 보정을 수행하였다(워터스(Waters) ToF G2-샘플 키트 2 파트: 700008892-1). 소화된 항원 결합 분자의 경우, 데이터 입수를 1,000 내지 4,000 m/z(ISCID: 30 eV)에서 수행하였다. 원래의 질량 스펙트럼을 측정하고 개별 상대 분자량으로 변환하였다. 결과의 시각화를 위해, 사유 소프트웨어를 사용하여 디컨벌루션된 질량 스펙트럼을 생성하였다.
실시예 2
OX40에 결합하는 2개의 항원 결합 도메인 및 FAP에 결합하는 하나의 항원 결합 도메인을 갖는 이중특이성 항체(FAP-OX40 컨터체)의 제조
FAP 결합자의 생성 및 제조는 본원에 참조로 혼입되는 WO 2012/020006 A2에 기재되어 있다. OX40 결합자는 WO 2017/055398 A2에 기재되어 있다.
2.1 FAP ( 4B9 )-OX40( 49B4 ) 컨터체 CD134-0093의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 항체를 도 1A에 기재된 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파, (G4S)2 연결자, VH(FAP)-C카파; 및
- 제2 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-C카파, (G4S)2 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및 상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)]).
하기 표 1은 이중특이성 항체 CD134-0093의 아미노산 서열을 나타낸다.
Figure pct00012
Figure pct00013
조립된 구조의 개략도는 도 1E에 도시되어 있다.
2.2 FAP ( 4B9 )-OX40(4 9B4 ) 컨터체 CD134-0094의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 항체를 도 1B에 기재된 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-CH1, (G4S)2 연결자, VL(FAP)-C카파; 및
- 제2 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-CH1, (G4S)2 연결자, VH(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및 상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)]).
하기 표 2는 이중특이성 항체 CD134-0093의 아미노산 서열을 나타낸다.
Figure pct00014
조립된 구조의 개략도는 도 1F에 도시되어 있다.
2.3 FAP ( 28H1 )-OX40( 49B4 ) 컨터체 P1AE0085의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 항체를 도 1A에 기재된 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파; 및
- 제2 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및 상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)]).
하기 표 3은 이중특이성 항체 P1AE0085의 아미노산 서열을 나타낸다.
Figure pct00015
조립된 구조의 개략도는 도 1G에 도시되어 있다.
2.4 FAP ( 4B9 )-OX40( 49B4 ) 컨터체 P1AE0086의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 항체를 도 1A에 기재된 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파; 및
- 제2 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및 상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)]).
하기 표 4는 이중특이성 항체 P1AE0086(컨터체 7)의 아미노산 서열을 나타낸다.
Figure pct00016
조립된 구조의 개략도는 도 1G에 도시되어 있다.
2.5 FAP ( 28H1 )-OX40( 49B4 ) 컨터체 P1AE0087의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 항체를 도 1B에 기재된 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-C카파; 및
- 제2 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및 상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)]).
하기 표 5는 이중특이성 항체 P1AE0087의 아미노산 서열을 나타낸다.
Figure pct00017
조립된 구조의 개략도는 도 1H에 도시되어 있다.
2.6 FAP ( 4B9 )-OX40( 49B4 ) 컨터체 P1AE0839의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 항체를 도 1B에 기재된 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-C카파; 및
- 제2 융합 폴리펩티드(N-말단에서 C-말단): VH(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및 상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15(2001)]).
하기 표 6는 이중특이성 항체 P1AE0839의 아미노산 서열을 나타낸다.
Figure pct00018
Figure pct00019
조립된 구조의 개략도는 도 1H에 기재되어 있다.
2.7 FAP(4B9 )-OX40(4 9B4 ) 컨터체 P1AE0821의 제조
2개의 융합 폴리펩티드를 포함하는 이중 특이성 항체를 도 1C에 도시한 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VH(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VH(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 7은 이중특이성 항체 P1AE0821(컨터체 11)의 아미노산 서열을 나타낸다.
Figure pct00020
조립된 구조의 개략도는 도 1I에 도시되어 있다.
2.8 FAP(4B9 )-OX40(4 9B4 ) 컨터체 P1AE1122( 컨터체 1)의 제조
2개의 융합 폴리펩티드를 포함하는 이중 특이성 항체를 도 1D에 도시한 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 8은 이중특이성 항체 P1AE1122의 아미노산 서열을 나타낸다.
Figure pct00021
조립된 구조의 개략도는 도 1J에 도시되어 있다.
2.9 FAP( 4B9 )-OX40( 49B4 ) 컨터체 P1AE1942(컨터체 2)의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VH(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VH(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 9는 항체 P1AE1942의 아미노산 서열을 도시한 것이다.
Figure pct00022
2.10 FAP( 4B9 )-OX40(4 9B4 ) 컨터체 P1AE1887(컨 터체 3)의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VH(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 10은 이중특이성 항체 P1AE1887의 아미노산 서열을 나타낸다.
Figure pct00023
조립된 구조의 개략도는 도 1K에 도시되어 있다.
2.11 FAP( 4B9 )-OX40(4 9B4 ) 컨터체 P1AE1888(컨 터체 4)의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VH(OX40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 11은 이중특이성 항체 P1AE1888의 아미노산 서열을 나타낸다.
Figure pct00024
2.12 FAP( 4B9 )-OX40(4 9B4 ) 컨터체 P1AE2254(컨 터체 5)의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파_RK(E123R, Q124K), GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX`40)-C카파_RK(E123R, Q124K), GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)). 또한, OX40의 VL 및 VH에 융합된 CH 및 C카파에서, 아미노산(이른바 하전된 잔기)을 도입하여 벤스 존스 단백질의 생성을 억제하고 정확한 짝지음, 즉 항-OX40 결합자 49B4의 CH1 도메인(K147E 및 K213E, 카밧 EU에 따른 번호부여)의 음전하 및 CL 도메인(E123R 및 Q124K, 카밧 EU에 따른 번호부여)의 양전하를 더욱 용이하게 하였다.
하기 표 12는 이중특이성 항체 P1AE2254의 아미노산 서열을 나타낸다.
Figure pct00025
조립된 구조의 개략도는 도 1L에 도시되어 있다.
2.13 FAP( 4B9 )-OX40(4 9B4 ) 컨터체 P1AE2340(컨 터체 6)의 제조
2개의 융합 폴리펩티드 및 하나의 경쇄를 포함하는 이중특이성 항체를하기와 같이 제조하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파_RK(E123R, Q124K), GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(OX40)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-C카파_RK(E123R, Q124K).
- 경쇄: VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)). 또한, CH 및 C카파를 OX40의 VL 및 VH에 융합하고, 아미노산(이른바 하전된 잔기)을 도입하여 벤스 존스 단백질의 생성을 억제하고 정확한 짝지음, 즉 항-OX40 결합자 49B4의 CH1 도메인(K147E 및 K213E, 카밧 EU에 따른 번호부여)의 음전하 및 CL 도메인(E123R 및 Q124K, 카밧 EU에 따른 번호부여)의 양전하를 더욱 용이하게 하였다.
하기 표 13은 이중특이성 항체 P1AE2340의 아미노산 서열을 나타낸다.
Figure pct00026
조립된 구조의 개략도는 도 1M에 도시되어 있다.
2.14 FAP( 4B9 )-OX40(4 9B4 ) 컨터체 P1AE2735(컨 터체 8)의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(FAP)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(FAP)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(OX40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-C카파.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 14는 이중특이성 항체 P1AE2735의 아미노산 서열을 나타낸다.
Figure pct00027
조립된 개략도는 도 1N에 도시되어 있다.
2.15 ( 4B9 )-OX40(4 9B4 ) 컨터체 P1AE2743(컨 터체 9)의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(FAP)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VH(OX40)-CH1.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(FAP)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VH(OX40)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 15는 서열 이중특이성 항체 P1AE2743의 아미노산 서열을 나타낸다.
Figure pct00028
2.16 FAP( 4B9 )-OX40(4 9B4 ) 컨터체 P1AE2762(컨 터체 10)의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(FAP)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(OX40)-CH1.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(FAP)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(OX40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(OX40)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 16은 이중특이성 항체 P1AE2762의 아미노산 서열을 나타낸다.
Figure pct00029
2.17 정제 후 분자의 생화학적 분석
Figure pct00030
2.18 대조군 분자로서 이중특이성 OX40 항체의 분석
(a) OX40에 대한 2가 결합 및 FAP에 대한 1가 결합을 갖는 이중특이성 항체를 WO 2017/055398 A2의 실시예 4.4와 유사하게 제조하였다(2+1 형식). 이 분자에서, 제1 중쇄(HC1)는 항-OX40 결합자 49B4의 하나의 Fab 단위(VHCH1)에 이어 (G4S) 연결자에 의해 항-FAP 결합자 28H1 또는 4B9의 VH 도메인에 융합된 Fc 놉 쇄로 구성된다. 구조물의 제2 중쇄(HC2)는 항-OX40 결합자 49B4의 Fab 도메인(VHCH1)에 이어 (G4S) 연결자에 의해 항-FAP 결합자 28H1 또는 4B9의 VL 도메인에 융합된 Fc 홀 쇄로 구성된다. 상기 분자의 개략도는 도 1O에 도시되어 있다.
(b) 항-FAP 결합자의 VH 및 VL 도메인이 항원에 결합하지 않는 생식세포계 대조군(DP47로 지칭됨). 상기 분자를 음성 "비표적화된" 대조군으로서 사용하였다.
(c) OX40에 대한 2가 결합 및 FAP에 대한 1가 결합을 갖는 이중특이성 항체를 WO 2017/060144 A1의 실시예 4.4와 유사하게 제조하였다(4+1 형식). 이 분자에서, 제1 중쇄(HC1)는 항-OX40 결합자 49B4의 2개의 Fab 단위(VHCH1_VHCH1)에 이어 (G4S) 연결자에 의해 항-FAP 결합자 4B9의 VH 도메인에 융합된 Fc 놉 쇄로 구성된다. 구조물의 제2 중쇄(HC2)는 항-OX40 결합자 49B4의 2개의 Fab 도메인(VHCH1_VHCH1)에 이어 (G4S) 연결자에 의해 항-FAP 결합자 4B9의 VL 도메인에 융합된 Fc 홀 쇄로 구성된다. 상기 분자의 개략도는 도 1P에 도시되어 있다.
OX40에 대한 1가 결합 및 FAP에 대한 2가 결합을 갖는 이중특이성 작용성 OX40 항체를 놉 인투 홀 기술을 적용함으로써 상이한 중쇄가 조립되게 하여 제조하였다. Pro329Gly, Leu234Ala 및 Leu235Ala를 중쇄의 불변부에 도입하여 Fc 수용체에 대한 결합을 제거하였다(WO 2012/130831 A1에 따름).
Figure pct00031
실시예 3
FAP-OX 항체의 특성규명
3.1 인간 OX40에 대한 결합(역동학적 친화도)
인간 OX40에 대한 FAP-OX40 항체의 결합을 비아코어 T100 계기(지이 헬스케어)를 사용하여 SPR에 의해 조사하였다. 포획 시스템(20 μg 항-인간 IgG(Fc); 오더 코드(Order Code): BR100839; 스웨덴 소재의 지이 헬스케어 바이오-사이언스 아베(GE Healthcare Bio-Sciences AB))의 약 8,000개의 공명 단위(RU)를 지이 헬스케어에서 공급되는 아민 커플링 키트를 사용하여 pH 5.0에서 CM5 칩(지이 헬스케어 BR-1005-30)에 커플링하였다. 전개 완충액은 PBS-P(pH 7.4, 20 mM 포스페이트 완충액, 2.7 mM KCl, 137 mM NaCl, 0.05% 계면활성제 P20)였다. 유동 세포를 25℃로 설정하고, 샘플 블럭을 12℃로 설정하고 전개 완충액으로 2회 프라이밍하였다. 이중특이성 항체를 5 μL/분의 유동 속도로 60초 동안 2 μg/mL 용액으로 주사함으로써 포획하였다. 회합은 1:3 희석액 중 인간 OX40을 600 nM로 시작하여 30 μL/분의 유동 속도로 120초 동안 주입함으로써 측정하였다. 해리 상을 720초까지 감시하고 샘플 용액을 전개 완충액으로 전환시킴으로써 유발(triggering)하였다. 표면은 3 M MgCl2로 10 μL/분의 유동 속도로 60초 동안 세척함으로써 재생성하였다. 벌크(bulk) 굴절률 차이는 항-인간 IgG(Fc) 표면으로부터 수득한 반응을 제함으로써 보정하였다. 맹검 주사(blank injection)도 제하였다(이중 참조). Kd 및 역동학적 매개변수의 계산을 위해, 랭뮤어(Langmuir) 1:1 모델을 사용하였다.
Figure pct00032
컨터체 둘다는 3가 항-OX40 항체에 대한 4+1 IgG-유사 형식과 비교하여 유사한 Kd 값을 가졌고, 친화도는 분자간 비교하였고, Rmax는 시험하는 다양한 분자의 가의 지표이다.
추가의 FAP-OX40 컨터체를 시험하였고, 하기 표 20에 제시된 Kd 값을 나타냈다.
Figure pct00033
3.2 인간 FAP에 대한 결합(동역학적 친화도)
인간 FAP에 대한 FAP-OX40 항체의 결합을 비아코어 T100 게기(지이 헬스케어)를 사용하여 SPR에 의해 조사하였다. 포획 시스템(15 μg 항-인간 IgG(Fc); 오더 코드: BR100839; 스웨덴 소재의 지이 헬스케어 바이오-사이언스 아베)의 약 12,000개의 공명 단위(RU)를 지이 헬스케어에서 공급되는 아민 커플링 키트를 사용하여 pH 4.5에서 CM5 칩(지이 헬스케어 BR-1005-30)에 커플링하였다. 부동화를 위한 전개 완충액은 HBS-N(pH 7.4, 10 mM HEPES, 150 mM NaCl, pH 7.4, 지이 헬스케어)였다. 유동 세포를 25℃로 설정하고, 샘플 블럭을 12℃로 설정하고 전개 완충액으로 2회 프라이밍하였다. 재조합 인간 FAP를 5 μL/분의 유동 속도로 60초 동안 25 μg/mL 용액으로 주사함으로써 포획하였다. 회합은 1:2 희석액 중 이중특이성 항체를 300 nM로 시작하여 30 μL/분의 유동 속도로 120초 동안 주입함으로써 측정하였다. 해리 상을 720초까지 감시하고 샘플 용액을 전개 완충액으로 전환시킴으로써 유발하였다. 표면은 10 mM 글리신(pH 1.5)으로 30 μL/분의 유동 속도로 60초 동안 세척함으로써 재생성하였다. 벌크 굴절률 차이는 항-히스티딘 표면으로부터 수득한 반응을 제함으로써 보정하였다. 맹검 주사도 제하였다(이중 참조). Kd 및 역동학적 매개변수의 계산을 위해, 랭뮤어 1:1 모델을 사용하였다.
재조합 인간 FAP에 대한 항-FAP/항-OX40 항체의 결합
분자 ka(1/M초) kd(1/초) Kd(M) Rmax(RU) t1/2(분)
컨터체
CD134-0093
3.54E+04 7.08E-04 2.00E-08 21.01 16.32
컨터체
CD134-0094
1.23E+04 4.62E-04 3.75E-08 28.54 24.98
대조군 4+1 4.04E+05 5.84E-04 1.45E-09 28.62 19.80
분자 둘다는 유사한 Kd 값을 가졌다. FAP-ECD에 대한 회합은 표준 대조군 분자에 비해 컨터체 형식에서 덜 최적화되었다. 그러나, 대조군 분자에서는, 2개의 4xG4S 펩티드 연결자를 사용하여 항-FAP 잔기를 C-말단에서 Fc 부분에 연결하였고, 컨터체에서는, 2개의 2xG4S 펩티드 연결자를 사용하여 항-FAP 잔기를 컨터체에 연결하였다. 추가의 FAP-OX40 컨터체를 시험하였고, 하기 표 22에 제시된 Kd 값을 나타냈다.
재조합 인간 FAP에 대한 항-FAP/항-OX40 항체의 결합
분자 ka(1/M초) kd(1/초) Kd(M) Rmax(RU) t1/2(초)
컨터체 4
(P1AE1888)
5.49E+04 1.95E-04 3.55E-09 29.9 3557.8
컨터체
P1AE0839
4.74E+04 1.83E-04 3.87E-09 17.2 3778.1
컨터체 1
(P1AE1122)
5.29E+04 2.02E-04 3.81E-09 26.1 3432.9
컨터체 2
(P1AE1942)
4.71E+04 2.54E-04 5.39E-09 18.5 2727.1
컨터체 5
(P1AE2254)
4.79E+04 2.66E-04 5.54E-09 20.6 2610.2
컨터체 6
(P1AE2340)
1.96E+05 2.18E-04 1.11E-09 28.1 3176
컨터체 3
(P1AE1887)
5.34E+04 2.06E-04 3.86E-09 35.4 3362.1
컨터체 11
(P1AE0821)
5.18E+04 3.03E-04 5.86E-09 16.9 2285
컨터체 8
(P1AE2735)
2.91E+05 5.13E-04 1.76E-09 33.4 1352.2
컨터체 9
(P1AE2743)
3.01E+05 4.86E-04 1.62E-09 36.9 1425.6
컨터체 10
(P1AE2762)
3.01E+05 3.59E-04 1.19E-09 40.9 1932.4
3.3 인간 OX40 및 인간 FAP에 대한 동시 결합
또한, 인간 FAP 및 인간 FAP의 동시 결합의 능력을 비아코어 T100 게기(지이 헬스케어)를 사용하여 SPR에 의해 조사하였다. 포획 시스템(20 μg 항-인간 IgG(Fc); 오더 코드: BR100839; 스웨덴 소재의 지이 헬스케어 바이오-사이언스 아베)의 약 8,000개의 공명 단위(RU)를 지이 헬스케어에서 공급되는 아민 커플링 키트를 사용하여 pH 4.5에서 CM5 칩(지이 헬스케어 BR-1005-30)에 커플링하였다. 전개 완충액은 PBS-P(pH 7.4, 20 mM 포스페이트 완충액, 2.7 mM KCl, 137 mM NaCl, 0.05% 계면활성제 P20)였다. 유동 세포를 25℃로 설정하고, 샘플 블럭을 12℃로 설정하고 전개 완충액으로 2회 프라이밍하였다. 이중특이성 항체를 5 μL/분의 유동 속도로 60초 동안 5 μg/mL 용액으로 주사함으로써 포획하였다. 회합은 제1 분석물(인간 OX40 또는 인간 FAP)을 30 μL/분의 유동 속도로 120초 동안 주입함으로써 측정하였다. 해리 상을 720초까지 감시하고 샘플 용액을 전개 완충액으로 전환시킴으로써 유발하였다. 표면은 3 M MgCl2으로 10 μL/분의 유동 속도로 60초 동안 세척함으로써 재생성하였다. 벌크 굴절률 차이는 인간 IgG(Fc) 표면으로부터 수득한 반응을 제함으로써 보정하였다. 맹검 주사도 제하였다(이중 참조). Kd 및 역동학적 매개변수의 계산을 위해, 랭뮤어 1:1 모델을 사용하였다. 모든 FAP-OX40 컨터체는 항원 둘다에 동시적 및 독립적으로 결합할 수 있었다.
실시예 4
세포에서의 결합
4.1 미접촉 인간 PBMC 및 활성화된 인간 PBMC에 대한 결합
연층(buffy coat)을 취리히 혈액 기부 센터로부터 입수하였다. 인간 PBMC를 피콜(ficoll) 밀도 구배 원심분리에 의해 단리하였다. 신선한 말초 혈액 단핵 세포(PBMC)를 단리하기 위해, 연층을 동일한 부피의 DPBS(라이프 테크놀로지스(Life Technologies)의 기브코, 카탈로그 번호 14190 326)로 희석하였다. 50 mL의 폴리프로필렌 원심분리 관(TPP, 카탈로그 번호 91050)을 15 mL 히스토파크(Histopaque) 1077(시그마 라이프 사이언스(SIGMA Life Science), 카탈로그 번호 10771, 폴리수크로스 및 나트륨 다이아트라이조에이트, 1.077 g/mL 밀도로 조정됨)로 보충하고, 연층 용액을 히스토파크 1077 위에 적층하였다. 상기 관을 30분 동안 400xg로 실온으로 저가속으로 정지 없이 원심분리하였다. 이어서, PBMC를 계면으로부터 채집하고 DPBS로 3회 세척하고 10% 소 태아 혈청(FBS, 라이프 테크놀로지의 기브코, 카탈로그 번호 16000-044, Lot 941273, 감마-조사됨, 마이크로 플라즈마 미함유 및 56℃에서 35분 동안 불활성화됨), 1 mM 나트륨 피루베이트(시그마, 카탈로그 번호 S8636), 1%(v/v) MEM 비필수 아미노산(시그마, 카탈로그 번호 M7145) 및 50 μM β-머캅토에탄올(시그마, M3148)로 보충된 로스웰 파크 메모리얼 인스티튜트(Roswell Park Memorial Institute, RPMI) 1640 배지(라이프 테크놀로지의 기브코, 카탈로그 번호 42401-042)로 이루어진 T 세포 배지 중에 재현탁시켰다. PBMC를 10%(v/v) 다이메틸 설폭사이드를 함유하는 FBS 중에서 냉동하였다.
냉동된 PBMC를 T 세포 배지에서 해동하고, PBMC를 단리 직후에 사용하거나(휴지 인간 PBMC에 결합), 이를 자극하여 T 세포의 세포 표면에서 강한 OX40 발현을 수득하였다(활성화된 인간 PBMC에 결합). 이어서, 미접촉 PBMC를 6 웰 조직 배양 플레이트에서 200 U/mL 프로류킨 및 2 μ/mL PHA-L로 보충된 T 세포 배지에서 2일 동안 배양한 후 1일 동안 미리 코팅된 6 웰 조직 배양 플레이트[4 μg/mL 항-인간 CD3(클론 OKT3) 및 2 μg/mL 항-인간 CD28(클론 CD28.2)]에서 T 세포 배지에서 배양하였다.
OX40의 검출을 위해, 미접촉 인간 PBMC 및 활성화된 인간 PBMC를 혼합하였다. 미접촉 인간 PBMC를 활성화된 인간 PBMC와 구별을 가능하게 하기 위해, 결합 전 미접촉 세포를 이플루오르670 세포 증식 염색(이바이오사이언스(eBioscience), 카탈로그 번호 65-0840-85)을 사용하여 표지하였다. 이어서, 1x10⁵의 미접촉 이플루오르 670 표지된 PBMC와 비표지된 활성화된 인간 PBMC의 1:1 혼합물을 둥근바닥 현탁 현탁 세포 96 웰 플레이트(그레이너 바이오-원(Greiner Bio-One), 카탈로그 번호 650185)의 각각의 웰에 첨가하고, 결합 분석을 수행하였다.
세포를 적정된 항-OX40 항체 구조물을 함유하는 50 μL/웰 4℃의 차가운 FACS 완충액에서 120분 동안 5℃ 암실에서 염색하였다. 과량의 FACS 완충액으로 3회 세척 후, 세포를 형광 표지된 항-인간 CD4(클론 RPA-T4, 마우스 IgG1 k, 바이오레전드(BioLegend), 카탈로그 번호 300532), 항-인간 CD8(클론 RPA-T8, 마우스 IgG1 k, 바이오레전드, 카탈로그번호 3010441)과 플루오레세인 이소티오시아네이트(FITC)-접합된 어피니퓨어(AffiniPure) 항-인간 IgG Fcγ-단편-특이성 염소 IgG F(ab')2 단편(잭슨 이뮤노 리서치(Jackson Immuno Research), 카탈로그 번호 109-096-098)의 혼합물을 함유하는 25 μL/웰 4℃의 차가운 FACS 완충액에서 염색하였다. 최종적으로, 플레이트를 0.2 μg/mL DAPI(산타 크루즈 바이오테크(Santa Cruz Biotec), 카탈로그 번호 Sc-3598)를 함유하는 85 μL/웰 FACS 완충액에 재현탁시키고 동일한 날에 5-레이저LSR-포르테사(5-laser LSR-Fortessa)(비디 바이오사이언스(BD Bioscience)의 디바(DIVA) 소프트웨어)를 사용하여 결과를 수득하였다.
도 2b 및 2d에 도시된 바와 같이, 휴지 인간 CD4 T 세포 또는 CD8 T 세포에 결합된 OX40에 특이성인 항원 결합 분자는 없었다. 대조적으로, 모든 항원 결합 분자(OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체, OX40(49B4) DP47 2+1 이중특이성 항체, OX40(49B4)-FAP(4B9) 4+1 이중특이성 항체, 컨터체 CD134-0093 및CD134-0094)는 활성화된 CD8+ 또는 CD4+ T 세포에 결합하였다(도 2a 및 2c). CD4+ T 세포에 대한 결합은 CD8+ T 세포에 대한 결합보다 훨씬 강했다. 2+1 설계의 모든 형식은 제2 특이성의 결합 잔기와는 독립적으로 OX40 발현(양성) 세포에 유사한 강도로 결합하였다. 또한, 4+1 구조물이 가장 강한 결합을 나타냈다. 컨터체 CD134-0093은 2+1과 4+1 형식 사이의 중간의 결합을 나타냈고, 제2 컨터체 CD134-0094는 CD4+ 및 CD8+ T 세포에 2+1 형식보다 약하게 결합했다. 음성 대조군 DP47 hu(인간) IgG1 항체(P329GLALA)는 활성화된 T 세포 또는 휴지 T 세포에 결합하지 않았다. OX40은 CD4 또는 CD8 T 세포에서 상향조절되지 않기 때문에, 모든 구조물(음성 대조군은 제외)의 결합은 CD4 T 세포에서 더 강했는데, 이는 OX40 발현이 CD8 T 세포에서보다 상기 세포에서 더 높음에 기인한다.
제2 실험의 결과는 도 2e 내지 2h에 도시되어 있다. 상기 도에 제시된 바와 같이, 시험된 분자(OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체, OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체, OX40(49B4) DP47 2+1 이중특이성 항체, 컨터체 P1AE0085, P1AE0086 및 P1AE0087)는 휴지 인간 CD4+ T 세포 또는 CD8+ T 세포에 결합하지 않았는데, 이는 OX40이 휴지 세포에서 발현되지 않음에 기인한다(도 2f 및 2h). 대조적으로, 모든 항원 결합 분자는 활성화된 인간 CD4+ T 세포 또는 CD8+ T 세포에 대한 결합을 나타냈다(도 2e 및 2g). 신호 크기는 CD8+ T 세포에서가 CD4+ T 세포에서보다 작았고, 이는 OX40 발현 수준(CD4+ 세포에서 높음)과 관련이 있다. 그러나, 각각의 시험된 분자의 결합 패턴은 CD4+ T 세포와 CD8+ T 세포간에 비등하였다. 모든 3개의 컨터체 분자는 OX40 발현 세포에 결합하지 않았지만, FAP 결합 클론과는 상관 없이 2+1 대조 분자보다 감소된 OX40 결합 능력을 나타냈다. 특히, 컨터체 P1AE0087의 결합은 컨터체 P1AE0085보다 더 감소되었다.
추가의 컨터체(컨터체 1 내지 11)의 활성화된 CD4+ T 세포에 대한 결합은 도 8a 내지 8d에 도시되어 있고, 활성화된 CD8+ T 세포에 대한 결합은 도 10a 내지 10d에 도시되어 있다. 예상한 바와 같이, 도 9a 내지 9d 및 도 11a 내지 11d 각각에서, 컨터체 11 내지 11은 휴지 인간 CD4 T 세포에 또는 CD8 T 세포에 결합하지 않았다. CD4+ T 세포에 대한 결합은 CD8+ T 세포에 대한 결합보다 훨씬 강했다. 2+1 설계의 모든 형식은 제2 특이성의 결합 잔기와는 독립적으로 OX40 양성 세포에 유사한 강도로 결합하였다. 음성 대조군(DP47 huIgG1 P329GLALA)은 활성화된 또는 휴지 T 세포에 결합하지 않았다. OX40은 휴지 CD4 또는 CD8 세포에서 상향조절되지 않음에 기인하여, 시험된 분자는 휴지 세포에 결합하지 않았다. 또한, 모든 구조물(음성 대조군 제외)의 결합은 CD4+ T 세포에서 더 강했는데, 이는 OX40 발현이 CD8+ T 세포에서보다 CD4+ T 세포에서 더 높음에 기인한다.
4.2 인간 FAP 발현 종양 세포에 대한 결합
FAP에 대한 결합을 인간 섬유아세포 활성화 단백질(huFAP) 발현 WM266-4 세포(ATCC CRL-1676)를 사용하여 시험하였다. OX40 음성 FAP 음성 종양 세포에 대한 결합의 결여는 뉴클라이트 레드(NucLight Red) 형광 단백질(핵에 한정됨)을 발현하는 A549 뉴클라이트(NucLight: 상표명) 적색 세포(에센 바이오사이언스(Essen Bioscience), 카탈로그 번호 4491)을 사용하여 비표지된 FAP 양성 WM266-4 세포로부터 분리를 가능하게 함으로써 시험하였다. 모(parental) A549(ATCC CCL-185)에 에센 셀 플레이어 뉴클라이트 레드 렌티바이러스(Essen Cell Player NucLight Red Lentivirus)(에센 바이오사이언스, 카탈로그 번호 4476; EF1α, 퓨로마이신)를 표준적인 에센 프로토콜에 따라 8 μg/mL 폴리브렌(polybrene)의 존재하에 3(TU/세포)의 MOI로 형질도입하였다. 이는 70% 이상의 형질 도입 효능을 야기하였다.
FACS 완충액 중 비표지된 WM266-4 세포와 비표지된 A549 뉴클라이트(상표명) 적색 세포의 혼합물을 둥근바닥 현탁 96 웰 플레이트(그레이너 바이-온, 셀스타(Cellstar), 카탈로그 번호 650185)의 각각의 웰에 첨가하고 결합 시험을 수행하였다. 플레이트를 4분 동안 400xg 및 4℃에서 원심분리하고, 상청액을 거둬냈다. 세포를 200 μL DPBS로 1회 세척하고, 펠릿(pellet)을 단시간의 온화한 와류에 의해 재현탁하였다. 모든 샘플을 제시된 농도 범위(적정됨)로 이중특이성 항원 결합 분자(1차 항체)를 함유하는 50 μL/웰의 4℃ 차가운 FACS 완충액에 재현탁시키고 120분 동안 4℃에서 항온배양하였다. 세포를 플루오레세인 이소티오시아네이트(FITC)-접합된 어피니퓨어 항-인간 IgG Fcγ-단편-특이성 염소 IgG F(ab')2 단편(잭슨 이뮤노 리서치, 카탈로그 번호 109-096-098)을 함유하는 25 μL/웰 4℃의 차가운 2차 항체 용액에서 추가로 염색하고 60분 동안 4℃로 암실에서 항온배양하였다. 최종적으로, 플레이트를 0.2 μg/mL DAPI(산타 크루즈 바이오테크, 카탈로그 번호 Sc-3598)를 함유하는 90 μL/웰 FACS 완충액에 재현탁시키고 동일한 날에 5-레이저 LSR-포르테사(비디 바이오사이언스의 디바 소프트웨어)를 사용하여 결과를 수득하였다.
도 3b 및 3d에 도시된 바와 같이, FAP 표적화된 항-OX40 이중특이성 항체는 인간 FAP 발현 표적 세포에 효율적으로 결합하였다. 따라서, 단지 FAP 표적화된 항-OX40 항원 결합 분자만이 직접적인 종양 표적화 특성을 나타냈다. FAP 4B9는 인간 FAP에 대해 높은 친화도를 갖는 반면, 28H1은 인간 FAP에 대해 낮은 친화도를 갖는다. FAP 표적화된 OX40(49B4)-FAP(4B9) 4+1 이중특이성 항체가 FAP+ 세포에 대해 가장 강력한 결합을 나타냈고, 2+1 컨터체 CD134-0093, 컨터체 CD134-0094에 이어 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체가 이의 뒤를 이었다. FAP 4B9는 28H1에 비해 인간 FAP에 더 높은 친화도를 가짐에 주목해야 한다. 컨터체 둘다의 FAP+ 세포에 대한 결합은 표적화된 2+1 항체 구조물을 함유하는 VHVL보다 약간 더 향상되었다. 비표적화된 OX40(49B4) DP47 2+1 이중특이성 항체 및 음성 대조군(DP47 huIgG1 항체(P329GLALA))은 어떠한 FAP+ 세포에도 결합하지 않았다. 활성화된 CD4 세포 및 FAP 양상 종양 세포의 EC50 값을 하기 표 23에 정리하였다.
(CD4+ T 세포에서) 상이한 형식의 FAP 표적화된 OX40(49B4) 이중특이성 항체의 세포 표면 인간 FAP 및 인간 OX40에 대한 EC50 값
형식 FAP+ 세포
EC50
[nM]
OX40+ 세포
EC50
[nM]
OX40(49B4)-FAP(4B9)
4+1 구조물
11.342 0.127
컨터체 1(CD134-0093) 61.231 1.693
컨터체 2(CD134-0094) 227.281 4.988
OX40(49B4)-FAP(28H1)
2+1 구조물
78.873 7.023
OX40(49B4) DP47
2+1 구조물
대조군
- -
추가의 실험에서, 컨터체 P1AE0085, P1AE0086 및 P1AE0087을 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체, OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체 및 OX40(49B4) DP47 2+1 이중특이성 항체(음성 대조군)과 비교하여 시험하였다. 결과를 도 3c 및 3d에 도시하였다. 모든 FAP 표적화된 항-OX40 항원 결합 분자는 인간 FAP 발현 세포에 결합하였다. FAP 4B9 클론은 28H1과 마찬가지로 인간 FAP에 높은 친화도를 갖는다. 결과적으로, OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체로 체고의 결합 특성이 관찰되었고, OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체는 예상한 바와 같이 감소된 결합을 나타냈다. 모든 3개의 컨터체는 FAP에 대한 결합을 나타냈지만, FAP+ 세포에 대한 결합은 둘다의 FAP 클론(4B9 및 28H1의 경우, OX40(49B4)-FAP 2+1 이중특이성 항체보다 약간 더 감소하였다. 연결자 길이는 huFAP에 대한 결합에 영향을 주지 않는 것으로 보이는데, 이는 컨터체 P1AE0085 및 P1AE0087이 매우 유사한 결합 특성을 나타냄에 기인한다. 비표적화된 2 OX40(49B4) DP47 2+1 이중특이성 항체 및 음성 대조군(DP47 huIgG1 항체(P329GLALA))은 어떠한 FAP+ 세포에도 결합하지 않았다. 또한, FAP-A549NLR에 결합한 분자는 없었는데, 이는 결합이 인간 FAP에 대해 특이성임을 나타낸다. 활성화된 인간 CD4 및 CD8 T 세포 및 T 양성 세포에 대한 결합의 EC50 값을 하기 표 24에 정리하였다.
(CD4+ T 세포에서) 상이한 형식의 FAP 표적화된 OX40(49B4) 이중특이성 항체의 세포 표면 인간 FAP 및 인간 OX40에 대한 EC50 값
형식 FAP+ 세포
EC50
[nM]
OX40+ CD4+
T 세포
EC50
[nM]
OX40+ CD8+
T 세포
EC50
[nM]
컨터체 P1AE0085(28H1) 102.34 n.c n.c
컨터체 P1AE0086(4B9) 5.48 n.c n.c
컨터체 P1AE0087(28H1) 42.26 63.89 7.30
OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체 14.94 0.20 0.30
OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체 0.75 0.22 0.31
OX40(49B4) DP47 2+1 이중특이성 항체 n.a 0.47 1.79
n.c.: 곡선 근사 없음. EC50 계산이 불가능함.
n.a.: 적용가능하지 않음.
컨터체 1 내지 10의 FAP+ 세포(NIH/3T3-huFAP 종양 세포)에 대한 결합 결과는 도 13a 내지 13d에 도시되어 있다. 모든 FAP 표적화된 항-OX40 항원 결합 분자는 인간 FAP 발현 세포에 결합하였다. 도 14a 내지 14d에 나타낸 바와 같이, 어떠한 FAP 표적화된 항-OX40 항원 결합 분자도 A549NLR(FAP 음성) 종양 세포에 결합이 불가능하였다. 컨터체 8이 FAP+ 세포에 가장 강하게 결합하였고, 컨터체 10 및 6이 이의 뒤를 이었다. 컨터체 둘다의 FAP+ 세포에 대한 결합은 표적화된 2+1 항체 구조물을 함유하는 VHVL보다 약간 더 향상되었다. 비표적화된 2+1 항-OX40 구조물(7718) 및 대조군(8105)는 어떠한 FAP+ 세포에도 결합하지 않았다. 활성화된 인간 CD4+ 세포 및 FAP 양성 종양 세포에 대한 EC50 값을 하기 표 25에 정리하였다.
(CD4+ T 세포에서) 상이한 형식의 FAP 표적화된 OX40(49B4) 이중특이성 항체의 세포 표면 인간 FAP 및 인간 OX40에 대한 EC50 값
형식 FAP+ 세포
EC50
[nM]
OX40+ CD4+ T 세포
EC50
[nM]
컨터체 1(P1AE1122) 4.45 0.257
컨터체 2(P1AE1942) 6.86 1.02
컨터체 3(P1AE1887) 7.68 25.39
컨터체 4(P1AE1888) 6.74 31.82
컨터체 5(P1AE2254) 11.74 0.677
컨터체 6(P1AE2340) 0.74 n.c.
컨터체 7(P1AE0086) 2.47 0.126
컨터체 8(P1AE2735) 0.736 7.02
컨터체 9(P1AE2743) 0.398 2.56
컨터체 10(P1AE2762) 0.464 1.22
OX40(49B4) DP47 2+1 이중특이성 항체(P1AD4352) n.d. 0.086
OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체(P1AD4353) 4.46 n.d.
OX40(49B4) DP47 4+1 이중특이성 항체(P1AD4524) 3.98 0.0001
n.c.: 곡선 근사 없음. EC50 계산이 불가능함.
n.a.: 적용가능하지 않음.
실시예 5
이중특이성 항-인간 OX40 결합 분자의 결합 성능
5.1 인간 OX40 및 리포터 유전자 NFκB-루시퍼라제를 발현하는 HeLa 세포
OX40의 이의 리간드에 대한 작용적 결합은 핵 인자 카파 B(NFκB)의 활성화를 통한 하류 신호전달을 유도한다(문헌[A. D. Weinberg et al., J. Leukoc. Biol. 2004, 75(6), 962-972]). 재조합 리포터 세포계 HeLa_hOx40_NFκB_Luc1을 생성하여 인간 OX40을 이의 표면에 발현케 하였다. 또한, 이는 루시퍼라제 유전자를 함유하는 리포터 플라스미드를 NFκB-감수성 증폭자 단편의 제어하에 있게 한다. OX40 유발은 핵 내에서 전좌되는 NFκB의 용량-의존성 활성화를 유도하고, 여기서 이는 리포터 플라스미드의 NFκB 감수성 증폭자에 결합하여 루시퍼라제 단백질의 발현을 증가시킨다. 루시퍼라제는 루시페린-산화를 촉매하여 빛을 방출하는 옥시페린을 생성한다. 이는 휘도계(luminometer)에 의해 정량화될 수 있다.
따라서, HeLa_hOx40_NFκB_Luc1 리포터 세포에서 NFκB 활성화를 유도하는 다양한 항-OX40 분자의 능력을 생체활성에 대한 척도로서 분석하였다.
2차 항체 또는 FAP+ 종양 세포계에 의해 선택된 이중특이성 OX40(49B4) 항체의 NFκB 활성화 능력(2가 FAP 표적화된 VHVL 또는 컨터체 형식 단독 및 구조물의 초가교결합에 의한 것)을 시험하였다. 세포 표면 FAP에 의한 FAP 결합 항체의 가교결합을 인간 섬유아세포 활성화 단백질(huFAP) 발현 NIH/3T3 huFAP 클론 19를 사용하여 시험하였다. 세포계를 발현 벡터 pETR4921을 갖는 마우스 배아 섬유아세포 NIH/3T3 세포계(ATCC CRL-1658)의 형질감염에 의해 생성하여 1.5 μg/mL 퓨로마이신 선택하에 huFAP를 발현시켰다.
부착성 HeLa_hOX40_NFκB_Luc1 세포를 0.2x10⁵ 세포/웰의 세포 밀도로 방새 배양하고 적정된 이중특이성 항-OX40(49B4) 항체(OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체, OX40(49B4) DP47 2+1 이중특이성 항체, 컨터체 CD134-0093 및 CD134-0094)를 함유하는 분석 배지에 의해 5시간 동안 자극하였다. 2차 항체의 초가교결합의 효과를 시험하기 위해, 2차 항체 항-인간 IgG Fcγ-단편-특이성 염소 F(ab')2 단편(잭슨 이뮤노 리서치, 109-006-098)을 함유하는 배지 25 μL/웰을 1:2 비(1차 항체 대 2차 항체)로 첨가하였다. 세포 표면 FAP 결합에 의한 초가교결합의 효과를 시험하기 위해, FAP+ 종양 세포(NIH/3T3-huFAP 클론 19)를 함유하는 매질 25 μL를 4:1의 비(리포터 세포/웰보다 4배 많은 FAP+ 종양 세포)로 공동배양하였다.
항온배양 후, 분석 상청액을 흡인하고, 플레이트를 DPBS로 2회 세척하였다. 발광의 정량화를 루시퍼라제 100 분석 시스템 및 리포터 용해 완충액(둘다 프로메가(Promega)로부터 입수, 카탈로그 번호 E4550 및 카탈로그 번호 E3971)을 사용하여 수행하였다. 요약하면, 세포를 -20℃에서 10분 동안 1x용해 완충액 당 30 μL의 첨가에 의해 용해시켰다. 세포를 37℃에서 20분 동안 해동한 후, 제공되는 루시퍼라제 시약을 90 μL/웰로 첨가하였다. 직후, 광 방출을 스펙트라맥스(SpectraMax) M5/M5e 마이크로플레이트 판독기(몰레큘러 디바이시스(Molecular Devices), 미국)로 500밀리초의 적분 시간(integration time)을 사용하고 모든 파장을 수집하는 어떠한 필터도 없이 정량화하였다. 방출된 상대적 광 단위(URL)를 HeLa_hOx40_NFκB_Luc1의 기본 발광에 의해 보정하고 프리즘4(Prism4)(그래프패드 소프트웨어(GraphPad Software), 미국)를 사용하여 로그 급수적 1차 항체 농도에 대해 블로팅(blotting)하였다.
도 4a 내지 4c에 도시된 바와 같이, 모든 항-OX40 구조물의 존재는 NFκB 활성화를 유도하였다. 2차 항-huIgG Fcγ-특이성 항체를 통한 초가교결합은 FAP 독립적인 방식으로 모든 결합자에 대해 NFκB 활성화를 증가시켰다. 2개의 이중특이성 항체, 2+1 구조물 OX40(49B4)-FAP(28H1) 및 OX40(49B4) DP47은 유사한 진행을 보였는데, 이는 FAP 표적화가 NFκB 유도에 영향을 주지 않음에 기인하는 것으로 여겨진다. 컨터체 CD134-0093 및 CD134-0094는 비등하게 수행을 보였으나, 가교결합하에 덜 강한 NFκB 활성화를 나타냈다(이의 효과가 내재적이고 가교결합 의존성이 아닌 것으로 여겨짐). FAP 표적화된 분자(채색된 삼각형, 반채색된 원 및 채색된 원)이 사용될 때, FAP 발현 종양 세포는 농도-의존적으로 NFκB 매개된 루시퍼라제-활성화의 유도를 강하게 증가시켰다. 이러한 효과는 OX40(49B4) DP47 2+1 이중특이성 항체(미채색된 원)에 의해서는 나타나지 않았는데, 이는 상기 구조물이 FAP+ 종양 세포에 의해 더욱 초가교결합될 수 없음에 기인한다. 또한, FAP 표적화된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체는 컨터체 CD134-0093 및컨터체 CD134-0094보다 강한 NFκB 활성화를 유도하였고, CD134-0094는 CD134-0093보다 더 강한 활성화를 나타냈다(도 4a). 요컨대, 컨터체 구조물은 OX40 매개된 NFκB 활성화를 유도할 수 있었지만 2차 항체 또는 세포 표면 발현된 FAP에 의해 가교결합된 FAP 표적화된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체보다 덜 활성이었다. 그러나, 2차 올리고머화 없이 첨가될 때에도 덜 활성이었다.
2차 실험의 결과를 도 4d 내지 4f에 도시하였다. 상기 도에 도시된 바와 같이, 시험되는 모든 항-OX40 분자((OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체, OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체, OX40(49B4) DP47 2+1 이중특이성 항체, 컨터체 P1AE0085, P1AE0086 및 P1AE0087)의 존재는 가교결합의 부재하에 최소의 NFκB 활성화를 유도하였다(도 4d). 모든 3개의 2+1 대조군 분자(OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체, OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체 및 OX40(49B4) DP47 2+1 이중특이성 항체)는 초가교결합이 2차 항체에 의해 제공될 때 매우 유사한 NFκB 활성화를 나타냈다(도 4f). 3개의 컨터체 분자는 대조군보다 약간 더 감소된 활성을 나타냈다. NFκB 활성화에서의 시험된 컨터체와 대조군 분자간의 이러한 차이는 FAP 발현 세포의 존재하에는 관찰될 수 없었다. 컨터체 분자 및 이들 각각의 FAP 표적화된 대조군 분자의 상응하는 곡선을 그래패드 프리즘 소프트웨어를 사용하여 하나의 전체 곡선 근사를 공유하는 것으로 분석하였고, 이는 효능에 있어서 유의한 차이가 없음을 나타낸다. 시험된 2개의 클론(4B9 및 28H1)간의 FAP에 대한 상이한 결합 친화도가 존재하긴 하였지만, 이는 상기 분석에서 현저한 상이함으로 도출되지는 않았다. DP47 표적화된 2+1 대조군 분자는 단지 최소의 활성만을 나타냈고, 이는 FAP 결합 잔기를 갖지 않음에 기인한다. 음성 대조군(DP47 huIgG1 항체(P329GLALA))은 가교결합과는 독립적으로 활성을 나타내지 않았다.
본 발명자들은 컨터체 1 내지 11 단독, 및 FAP+ 종양 세포계에 의한 이중특이성 항체의 초가교결합에 의한 것을 추가로 시험하였다. 도 15a 내지 15d에는 FAP 발현 종양 세포의 존재하에 NFκB 활성화가 도시되어 있다. FAP에 의한 가교결합에 의하지 않은 NFκB 활성화는 도 16a 내지 16d에서 볼 수 있다. FAP+ 세포에 의한 가교결합에 의한 및 의지 않은 HeLa 세포에서 NFκB 활성화에 대한 곡선하 면적의 요약은 도 17에 도시되어 있다. 모든 항-OX40 구조물의 존재는 NFκB 활성화를 유도하였다. FAP+ 종양 세포를 통한 초가교결합은 모든 시험된 이중특이성 항체에 대해 NFκB 활성화를 증가시켰다. FAP 표적화된 분자를 사용할 때, FAP 발현 종양 세포는 농도 의존적으로 NFκB 매개된 루시퍼라제 활성화의 유도를 강하게 증가시켰다. 이러한 효과는 2+1 형식의 FAP 결합 잔기가 비결합 DP47 단위(미채색된 삼각형)로 대체될 때에는 나타나지 않았는데, 이는 상기 구조물이 FAP+ 종양 세포에 의해 더욱 초가교연결될 수 없음에 기인한다. 컨터체 모두는 OX40(49B4)-FAP(4B9) 2+1 이중특이성 항체와 비등한 수행을 나타냈다.
5.2 부분최적화 TCR 유발된 휴지 인간 PBMC 및 세포 표면 FAP에 의한 초가 교결합 OX40 매개된 공동자극
섹션 5.1에 제시한 바와 같이, FAP+ 종양 세포의 첨가는 인간 OX40 리포터 세포계에서 OX40 수용체의 강한 올리고머화를 제공함으로써 FAP 표적화된 2가 항-OX40 항체에 의해 유도된 NFκB 활성을 강하게 증가시킬 수 있다. 마찬가지로, 본 발명자들은 NIH/3T3-huFAP 클론 19의 존재하에 FAP 표적화된 2가 항-OX40 항체를 휴지 인간 PBMC 세포의 부분최적화 TCR 자극을 유지하는 이의 능력에 대해 시험하였다.
인간 PBMC 표본은 (1) 휴지 OX40 음성 CD4+ 및 CD8+ T 세포 및 (2) 세포 표면 상에 다양한 Fcγ 수용체 분자를 갖는 항원 제조 세포, 예컨대 B 세포 및 단핵구를 함유한다. 인간 IgG1 항-인간 CD3 항체는 이의 Fc 부분에 의해 존재하는 Fcγ 수용체 분자에 결합하고 OX40 음성 CD4+ 및 CD8+ T 세포에서 연장된 TCR 활성화를 매개한다. 이어서, 이는 수시간내에 OX40을 발현하기 시작한다. OX40에 대한 기능성 작용성 화합물은 활성화된 CD4+ 및 CD8+ T 세포에 존재하는 OX40 수용체를 통해 신호전달을 할 수 있고 TCR 매개된 자극을 지원한다.
휴지 인간 PBMC를 조사된 FAP+ NIH/3T3-huFAP 클론 19 세포 및 적정된 항-OX40 구조물의 존재하에 부분최적화 농도의 항-CD3 항체로 5일 동안 자극하였다. T 세포 생존 및 증식에 대한 효과를 총 세포 수, 및 T 세포 활성화에 대해 형광 표지된 항체 및 성숙화 마커(CD25/CD127)에 의한 공동염색(유동 세포분석법에 의함)을 감시하여 분석하였다.
마우스 배아 섬유아세포 NIH/3T3-huFAP 클론 19 세포를 세포 해리 완충액(인비트로겐, 카타로그 번호 13151-014)을 사용하여 37℃에서 10분 동안 수확하였다. 세포를 DPBS로 1회 세척하였다. 항온배양기(헤라 셀 150(Hera Cell 150))에서, NIH/3T3-huFAP 클론 19 세포를 멸균 96-웰 둥근바닥 부착 조직 배양 플레이트(TPP, 카탈로그 번호 92097)내의 T 세포 배지에서 0.2x10⁵ 세포/웰의 밀도로 37℃ 및 5% CO2로 밤새 배양하였다. 다음날, 이를 엑스선 조사기에서 4500 RAD의 선량을 사용하여 조사하여 종양 세포계에 의한 인간 PBMC의 후기 과성장을 억제하였다.
인간 PBMC를 피콜 밀도 원심분리에 의해 단리하였다. 세포를 각각의 웰에 0.6x10⁵ 세포/웰로 첨가하였다. 항-인간 CD3 항체(클론 V9, 인간 IgG1)(최종 농도 [10 nM]), FAP 표적화된 2가 항-OX40 항원 결합 분자 및 컨터체를 제시된 농도로 첨가하였다. 세포를 항온 배양기(헤라 셀 150)내에서 37℃ 및 5% CO2로 4일 동안 활성화시켰다.
이어서, 세포를 형광 염색제-접합된 항체 항-인간 CD4(클론 RPA-T4, 바이오레전드, 카탈로그 번호 300532), CD8(클론 RPa-T8, 바이오레전드, 카탈로그 번호 3010441), CD25(클론 M-A251, 바이오레전드, 카탈로그 번호 356112) 및 CD127(클론 A019D5, 바이오레전드, 카탈로그 번호 351324)로 4℃에서 20분 동안 표면염색하였다. 세포 펠릿을 FACS 완충액으로 1회 세척하였다. 최종적으로, 플레이트를 0.2 μg/mL DAPI(산타 크루즈 바이오 테크, 카탈로그 번호 Sc-3598)를 함유하는 85 μL/웰 FACS 완충액에 재현탁시키고 동일한 날에 5-레이저 LSR-포르테사(비디 바이오사이언스의 디바 소프트웨어)를 사용하여 결과를 수득하였다.
도 5a 내지 5f에 도시된 바와 같이, 비표적화된 OX40(49B4) DP47 2+1 이중특이성 항체(미채색 삼각형)에 의한 공동자극은 부분최적화 TCR 자극된 CD4 및 CD8 T 세포를 유지하지 못했다. NIH/3T3-huFAP 클론 19 세포의 존재하에, FAP 표적화된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체(채색된 삼각형) 및 2+1 컨터체 CD134-0093 및 CD134-0094의 초가교결합은 인간 CD4 및 CD8 T 세포에서 생존을 강하게 촉진하였고 증폭된 활성화된 표현형을 유도하였다. 또한, 특히, 컨터체 CD134-0093(채색된 원)은 활성화에 대해 표적화된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체와 유사한 특성을 나타내는 것으로 보인다. 그러나, 컨터체 CD134-0094(반채색된 원)는 CD4 T 세포보다 CD8 T 세포에 대해 더 강한 활성화를 나타냈고(도 5d), 이는 컨터체 CD134-0093 및 FAP 표적화된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체의 CD4 T 세포에 대한 활성와 비등한 활성화를 입증한다. 요컨대, 생체활성 및 T 세포 활성화의 결과는 도 6에 도시되어 있고, 여기서 각각의 구조물의 작용적 능력이 곡선하 면적으로서 분석된 마커에 대해 정령화되고 서로에 대해 도표화된다. 도 6에 도시된 바와 같이, 컨터체 CD134-0093은 FSC-A 및 CD25에 대해 CD4 및 CD8 T 세포 둘다에서 가장 강한 활성화를 나타냈다. 상기 분자는 FAP 표적화된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체보다 효능이 있는 것으로 여겨지고, 이는 CD134-0093의 약 75%만큼 강하다. 컨터체 CD134-0094는 조금 덜 효능이 있는 것으로 여겨지는데, 이는 CD25만이 상향조절 되고 CD4 및 CD8 T 세포의 크기(FSC-A)가 증가하지 않았음에 기인한다. 또한, 상향조절된 2+1 분자 및 음성 대조군은 어떠한 활성화도 나타내지 않았다(매우 낮은 정규화된 AUC 값).
추가의 실험에서, 비표적화된 OX40(49B4) DP47 2+1 이중특이성 항체에 의한 공동자극은 부분 최적화된 CD4+ 및 CD8+ T 세포를 유지하지 못했다. FAP 표적화된 2가 항-OX40 항체 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체 및 OX40(49B4)-FAP(4B9), 및 3개의 컨터체 분자(P1AE0085, P1AE0086 및 P1AE 0087)는 NIH/3T3-huFAP 클론 19 세포의 존재하에 1차 인간 CD4 및 CD8 T 세포의 증폭된 활성화를 강하게 촉진하였다. P1AE0086은 상응하는 2+1 4B9 대조군 항체 OX40(49B4)-FAP(4B9) 이중특이성 항체와 매우 유사한 T 세포 활성화를 유발하였다. 이는 인간 FAP에 대해 더 낮은 친화도를 갖는 것으로 공지되어 있는 28H1 FAP 결합자를 갖는 분자보다 활성화된 표현형을 야기하였다. 컨터체 P1AE0085 및 P1AE0087은 CD4 및 CD8 T 세포에서 2+1 대조군 분자 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체와 유사한 CD25 발현 및 이보다 약간 더 높은 FSC-A MFI를 나타냈다. 1차 PBMC에 의한 상기 분석은 고 친화도 결합자(4B9)를 함유하는 FAP 표적화된 분자가 낮은 친화도 FAP 결합자(28H1)를 갖는 분자보다 높은 효능이 있음을 나타낸다. 생체활성 및 T 세포 활성화의 결과는 도 7a 내지 7d에 도시되어 있다.
컨터체 7, 8, 9 및 10의 부분최적화 TCR 자극된 CD4+ 및 CD8+ T 세포를 유지하는 능력도 시험하였다. 도 18a 및 18b에는 부분최적화 CD3 자극 후 표면 마커 CD25에 의해 나타나는 CD4 T 세포의 활성화가 도시되어 있다. 도 18c 및 18d에는 표면 마커 CD25에 의해 나타나는 CD8 T 세포의 활성화가 도시되어 있다. 도 19a 및 19b에는 CD4 T 세포의 FSC-A MFI가 도시되어 있고, 도 19c 및 19d에는 CD8 T 세포의 FSC-A MFI가 도시되어 있다. 이플루오르 670은 세포 분열의 측정을 위한 증식 염색제이다. CD4 T 세포의 증식에 대한 이플루오르 670 수준이 도 20a 및 20b에 도시되어 있고, CD8 T 세포의 증식이 도 20c 및 20d에 도시되어 있다. CD4 T 세포에 대한 IL-7Ra(CD127)의 하향조절은 도 21a 및 21b에 도시되어 있고, CD8 T 세포에 대한 것은 도 21c 및 21d에 도시되어 있다. 모든 결과는 NIH/3T3-huFAP 클론 19 세포의 존재하에 컨터체 및 OX40(49B4)-FAP(4B9) 이중특이성 항체(채색된 삼각형)의 초가교 연결이 인간 CD4에서 및 더 작은 정도로 CD8 T 세포에서 생존을 강하게 촉진하고 증폭된 활성화된 표현형을 유도함을 입증한다. 도 22a 내지 22d에는 다양항 생체활성의 결과가 곡선하 면적으로서 정리되어 있다.
5.3 결과 정리
요컨대, 2+1 컨터체 CD134-0093은 2+1 컨터체 CD134-0094보다 우수한 수행을 보였다. 활성화된 CD4 T 세포에 대한 CD134-0093의 결합은 둘다 유사한 결합 특성을 나타내는 FAP 표적화된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체 및 CD134-0094 것보다 더 강하였다(도 2a). 컨터체 둘다는 WM266-4 세포에서 인간 표면 FAP에 대한 우수한 결합을 입증하였고(도 3a), 결합 강도는 OX40(49B4)-FAP(4B9) 4+1 이중특이성 항체(고 친화도 결합자 4B9를 포함함) 및 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체(저 친화도 결합자 28H1을 포함함)의 사이였다. 컨터체의 형식이 실시예 2.9에 기재된 OX40(49B4)-FAP(28H1) 2+1 이중특이성 항체와 상이한 경우에도, 결합 특성은 우수하거나 심지어 더 우수한 것으로 보인다. 그러나, 이는 OX40(49B4)-FAP(4B9) 4+1 이중특이성 항체(실시예 2.9)의 MFI에는 도달하지 못한다. 가교결합 NIH 3T3 huFAP에 의한 NFκB 활성화를 보면, 컨터체는 (49B4)-FAP(28H1) 2+1 이중특이성 항체에 비해 중간 정도의 활성화를 나타냈지만 OX40(49B4) DP47 2+1 이중특이성 항체보다는 여전히 더 강했다(도 4a). 컨터체 둘다의 FAP 도메인은 가교결합자로서 작용하고 OX40 신호전달을 활성화시킬 수 있는 것으로 보인다. 제2 Fcγ 특이성 항체를 결합자로서 사용하여, 컨터체 둘다는 유사한 NFκB 활성화를 나타냈지만 표적화된 대조군 분자보다는 덜 우수한 수행을 나타냈다(도 4b). 컨터체의 생체활성 시험은 CD134-0093이 CD4 및 CD8 T 세포에 CD134-0094보다 더 확연한 활성화된 표현형을 유도함을 나타냈다(도 5a 내지 5d). 컨터체 CD134-0093은 2가 2+1 형태보다도 T 세포에서 심지어 더 강한 활성화를 입증하였다(도 6).
컨터체 P1AE0085, P1AE0086 및 P1AE 0087은 활성화된 CD4+ 및 CD8+ T 세포의 표면에서 발현된 OX40에 대해 2가 항-OX40 대조군 분자보다 약간 감소된 능력을 나타냈다(도 2e 내지 2h). 또한, P1AE0085, P1AE0086 및 P1AE0087은 NIH-3T3 huFAP 클론 19 세포에 발현된 인간 FAP에 대해 이의 각각의 대조군(2+1 4B9 및 28H1 FAP 결합자)에 비해 부분적으로 감소된 결합을 나타냈다(도 3c 및 3d). 고 친화도 FAP 결합자 4B9를 함유하는 분자는 인간 FAP에 대해 저 친화도 28H1 결합자보다 우월한 결합을 입증하였다. NFκB 활성화 분석은 NIH-3T3 huFAP 클론 19 세포를 통해 가교결합될 때 3개의 컨터체 분자 P1AE0085, P1AE0086 및 P1AE0087이 대조군 FAP 표적화된 분자와 유사한 NFκB 활성화를 유도함을 나타냈다(도 4f). HeLa NFκB 리포터 분석에서 저 친화도 및 고 친화도 FAP 표적화된 항-OX40 분자의 효능에 있어서의 차이는 없었다. 또한, 컨터체 분자의의 생체활성을 1차 인간 PBMC 및 NIH-3T3 huFAP 클론 19 세포를 가교결합 세포로서 5일 활성화 분석에 사용하여 시험하였다. 4B9 FAP 결합자를 갖는 분자는 28H1 결합자보다 더 활성화된 표현형을 CD4+ 및 CD8+ T 세포에 유도하였다. 컨터체 분자는 이의 각각의 대조군 분자와 비등한 수행을 보였다. 요컨대, 이러한 데이터는 컨테체 분자 P1AE0085, P1AE0086 및 P1AE0087이 대조군 분자와 유사한 효능을 갖지만 OX40 및 huFAP에 대해 약간 감소된 결합 능력을 가짐을 나타낸다.
전체적으로, 상이한 형식에도 불구하고, 컨터체(및 특히 CD134-0093)는 결합 및 T 세포 활성화에 대해 더 우수한 특성을 갖지는 않더라도 FAP 표적화된 2+1 항-OX40 항체와 비등한 특성을 갖는 것으로 보인다.
실시예 6
4- 1BB에 결합하는 2개의 항원 결합 도메인 및 FAP에 결합하는 하나의 항원 결합 도메인을 갖는 이중특이성 항체(FAP-4-1BB 컨터체)의 제조
FAP 결합자의 생성 및 제조는 본원에 참조로 혼입되는 WO 2012/020006 A2에 기재되어 있다. 클론 20H4.9의 4-1BB 결합자, VH 및 VL 서열을 US 7,288,638 B2 또는 US 7,659,384 B2에 따라 수득하였다.
6.1 FAP ( 4B9 )-4- 1BB ( 20H4 .9) 컨터체 P1AE1899의 제조
2개의 융합 폴리펩티드를 포함하는 이중 특이성 항체를 도 1A에 도시한 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(4-1BB)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(4-1BB)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(4-1BB)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(4-1BB)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 26은 이중특이성 항체 P1AE1899의 아미노산 서열을 나타낸다.
P1AE1899의 서열
서열번호 설명 서열
143 제1 융합 폴리펩티드(Fc 놉) QVQLQQWGAGLLKPSETLSLTCAVYGGSFSGYYWSWIRQSPEKGLEWIGEINHGGYVTYNPSLESRVTISVDTSKNQFSLKLSSVTAADTAVYYCARDYGPGNYDWYFDLWGRGTLVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEIVLTQSPATLSLSPGERATLSCRASQSVSSYLAWYQQKPGQAPRLLIYDASNRATGIPARFSGSGSGTDFTLTISSLEPEDFAVYYCQQRSNWPPALTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
144 제2 융합 폴리펩티드(Fc 홀) QVQLQQWGAGLLKPSETLSLTCAVYGGSFSGYYWSWIRQSPEKGLEWIGEINHGGYVTYNPSLESRVTISVDTSKNQFSLKLSSVTAADTAVYYCARDYGPGNYDWYFDLWGRGTLVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEIVLTQSPATLSLSPGERATLSCRASQSVSSYLAWYQQKPGQAPRLLIYDASNRATGIPARFSGSGSGTDFTLTISSLEPEDFAVYYCQQRSNWPPALTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
조립된 구조의 개략도는 도 1E에 기재되어 있다(OX40이 4-1BB로 대체됨).
6.2 FAP( 4B9 )-4- 1BB ( 20H4 .9) 컨터체 P1AE2051의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(4-1BB)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(4-1BB)-C카파_RK(E123R, Q124K), GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(4-1BB)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(4-1BB)-C카파_RK(E123R, Q124K), GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)). 또한, OX40의 VL 및 VH에 융합된 CH 및 C카파에서, 아미노산(이른바 하전된 잔기)을 도입하여 벤스 존스 단백질의 생성을 억제하고 정확한 짝지음, 즉 항-OX40 결합자 49B4의 CH1 도메인(K147E 및 K213E, 카밧 EU에 따른 번호부여)의 음전하 및 CL 도메인(E123R 및 Q124K, 카밧 EU에 따른 번호부여)의 양전하를 더욱 용이하게 하였다.
하기 표 27은 이중특이성 항체 P1AE2051의 아미노산 서열을 나타낸다.
P1AE2051의 서열
서열번호 설명 서열
145 제1 융합 폴리펩티드(Fc 놉) QVQLQQWGAGLLKPSETLSLTCAVYGGSFSGYYWSWIRQSPEKGLEWIGEINHGGYVTYNPSLESRVTISVDTSKNQFSLKLSSVTAADTAVYYCARDYGPGNYDWYFDLWGRGTLVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVEDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDEKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEIVLTQSPATLSLSPGERATLSCRASQSVSSYLAWYQQKPGQAPRLLIYDASNRATGIPARFSGSGSGTDFTLTISSLEPEDFAVYYCQQRSNWPPALTFGGGTKVEIKRTVAAPSVFIFPPSDRKLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
146 제2 융합 폴리펩티드(Fc 홀) QVQLQQWGAGLLKPSETLSLTCAVYGGSFSGYYWSWIRQSPEKGLEWIGEINHGGYVTYNPSLESRVTISVDTSKNQFSLKLSSVTAADTAVYYCARDYGPGNYDWYFDLWGRGTLVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVEDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDEKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEIVLTQSPATLSLSPGERATLSCRASQSVSSYLAWYQQKPGQAPRLLIYDASNRATGIPARFSGSGSGTDFTLTISSLEPEDFAVYYCQQRSNWPPALTFGGGTKVEIKRTVAAPSVFIFPPSDRKLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
조립된 구조의 개략도는 도 1L에 도시되어 있다(OX40이 4-1BB)로 대체됨).
6.3 정제 후 분자의 생화학적 분석
하기 표 28은 FAP-4-1BB 컨터체의 수율 및 최종 단량체 함량을 정리한 것이다.
FAP-4-1BB 컨터체의 생화학적 분석
구조물 단량체[%]
(SEC)
단백질 A 사용 후 수율
[mg/L]
컨터체 P1AE1899 100 0.72
컨터체 P1AE2051 100 0.06
인간 FAP에 대한 FAP-4-1BB 항체의 결합을 비아코어 T100 계기(지이 헬스케어)를 사용하여 SPR에 의해 실시예 3.2에 기재된 바와 같이 조사하였다. Kd 및 역동학적 매개변수의 계산을 위해, 랭뮤어 1:1 모델을 사용하였다.
재조합 인간 FAP에 대한 항-FAP/항-4-1BB의 결합
분자 ka(1/M초) kd(1/초) Kd(M) Rmax(RU) t1/2(초)
컨터체
P1AE1899
5.41E+04 2.80E-04 5.17E-09 18.8 2475.7
컨터체
P1AE2051
4.40E+04 3.67E-04 8.32E-09 6.7 1891.1
분자 둘다는 유사한 Kd 값을 갖는다.
7.2 인간 4- 1BB 및 NFκB - 루시퍼라제 리포터 유전자 발현 리포터 세포계 Jurkat-hu4-1BB-NFkB-luc2에서 NFκB 활성
4-1BB(CD137)의 이의 리간드(4-1BBL)에 대한 작용성 결합은 핵 인자 카파 B(NFκB)의 활성화를 통한 하류 신호전달을 유도하고 CD8 T 세포의 생존 및 활성화를 촉진한다(문헌[Lee HW, Park SJ, Choi BK, Kim HH, Nam KO, Kwon BS. 4-1BB promotes the survival of CD8 (+) T lymphocytes by increasing expression of Bcl-x(L) and Bfl-1. J Immunol 2002; 169:4882-4888]). 2+1 H2H 항-4-1BB 및 항-FAP huIgG1 PGLALA 이중특이성 항체에 의해 매개된 상기 NFκB 활성화를 감시하기 위해, Jurkat-hu4-1BB-NFkB-luc2 리포터 세포계를 프로메가(독일)로부터 구입하였다. 상기 세포를 10%(v/v) 소 태아 혈청(FBS, 라이프 테크놀러지스의 기브코, 카탈로그 번호 16000-044, Lot 941273, 감마-조사됨, 마이크로 플라즈마 미함유, 열 불활성화됨), 2 mM L-알라닌-L-글루타민 다이펩티드(글루타-맥스-I(Gluta-MAX-I), 라이프테크놀러지스의 기브코, 카탈로그 번호 35050-038), 1 mM 나트륨 피루베이트(시그마-알드리치 카탈로그 번호 S8636), 1%(v/v) MEM-비필수 아미노산 용액 100x(시그마-알드리치, 카탈로그 번호 M7145), 600 μg/mL G-418(로슈, 카탈로그 번호 04727894001), 400 μg/mL 하이그로마이신 B(로슈, 카탈로그 번호 10843555001) 및 25 mM HEPES(시그마 라이프 사이언스(Sigma Life Sience), 카탈로그 번호 H0887) 100 mL로 보충된 RPMI 1640 배지(라이프테크놀러지스의 기브코, 카탈로그 번호 42401-042) 중 현택 세포로서 배양하였다. 분석을 위해, 세포를 수확하고 10%(v/v) FBS 및 1%(v/v) 글루타-맥스-I로 보충된 분석 배지, 즉 RPMI 1640 배지 중에 현탁시켰다. 2x10³개의 Jurkat-hu4-1BB-NFkB-luc2 리포터 세포를 함유하는 10 μL를 뚜껑을 갖는 멸균 백색 384-웰 등근바닥 조직 배양 플레이트(코닝(Corning), 카탈로그 번호 3826)의 각각의 웰로 ?グ若?. 적정된 농도의 컨터체 2+1 이중특이성 작용성 항-4-1BB(20H4.9) x 항-FAP(4B9) huIgG1 P329GLALA 항체, 항-4-1BB(20H4.9) huIgG1 P329GLALA 항체, 항-4-1BB(20H4.9) huIgG4 및 동종 대조군(DP47 hu IgG1 P329GLALA 항체)을 함유하는 10 μL의 분석 배지를 첨가하였다. 최종적으로, 10 μL의 분석 배지 단독 또는 1x10⁴개 세포의 FAP 발현 세포 NIH/3T3-huFAP 클론 19(전술된 것)를 함유하는 배지로 보충하고, 플레이트를 세포 항온배양기에서 37℃ 및 5% CO2에서 6시간 동안 항온배양하였다. 6 μL의 새로 해동된 원-글로(One-Glo) 루시퍼라제 분석 검출 용액(프로메가, 카탈로그 번호 E6110)을 각각의 웰에 첨가한 직후, 발광을 테칸 마이크로플레이트 판독기를 사용하여 측정하였다(500밀리초의 적분 시간, 모든 파장을 수집하는 필터는 부재).
도 23a에 도시된 바와 같이, FAP 발현 세포의 부재하에, Jurkat-hu4-1BB-NFkB-luc2 리포터 세포계에서 강한 인간 4-1BB 수용체 활성화를 유도하여 NFκB 활성화 및 이에 따른 루시퍼라제 발현을 야기할 수 있는 분자는 없었다. FAP 발현 세포, 예컨대 NIH/3T3-huFAP 클론 19(인간-FAP-형질감염 마우스 섬유아세포 세포계)의 존재하에(도 2b), 이중특이성 2+1 FAP-4-1BB 컨터체 및 2+1 이중특이성 작용성 항-4-1BB(20H4.9) x 항-FAP(4B9) huIgG1 P329GLALA 항체(흑색으로 채색된 별)는 Jurkat-hu4-1BB-NFkB-luc2 리포터 세포계에서 NFκB 활성화된 루시퍼라제 활성의 강한 증가를 야기하였고, 이는 비표적화된 대조군 4-1BB 항체에 의해 매개된 활성화를 상회하였다. 활성화 곡선의 EC50 값 및 곡선하 면적(AUC)을 하기 표 30 및 31에 정리하였다.
도 23b에 나타낸 활성화 곡선의 EC50 값
EC50[nM] NIH/3T3-huFAP 클론 19
컨터체
P1AE1899
0.070
컨터체
P1AE2052
0.055
2+1 이중특이성 작용성 항-4-1BB(20H4.9) x 항-FAP(4B9) huIgG1 P329GLALA 항체 0.020
4-1BB(20H4.9) huIgG1 P329GLALA 0.321
4-1BB(20H4.9) huIgG4 0.701
비표적화된 (DP47) huIgG1 P329GLALA n.d.
도 23b에 나타낸 활성화 곡선의 곡선하 면적(AUC)
AUC NIH/3T3-huFAP 클론 19
컨터체
P1AE1899
36079
컨터체
P1AE2052
36239
2+1 이중특이성 작용성 항-4-1BB(20H4.9) x 항-FAP(4B9) huIgG1 P329GLALA 항체 53529
4-1BB(20H4.9) huIgG1 P329GLALA 15458
4-1BB(20H4.9) huIgG4 13032
비표적화된 (DP47) huIgG1 P329GLALA n.d.
실시예 8
CD40에 결합하는 2개의 항원 결합 도메인 및 FAP에 결합하는 하나의 항원 결합 도메인을 갖는 이중특이성 항체(FAP-CD40 컨터체)의 제조
FAP 결합자의 생성 및 제조는 본원에 참조로 혼입되는 WO 2012/020006 A2에 기재되어 있다. 클론 20H4.9의 CD40 결합자, VH 및 VL 서열을 WO 2006/128103의 서열번호 10 및 서열번호 16에 따라 수득하였다.
8.1 FAP ( 4B9 )-CD40 컨터체 P1AE1799의 제조
2개의 융합 폴리펩티드를 포함하는 이중 특이성 항체를 도 1A에 도시한 바와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(CD40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(CD40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(CD40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(CD40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 32는 이중특이성 항체 P1AE1799의 아미노산 서열을 나타낸다.
P1AE1799의 서열
서열번호 설명 서열
155 제1 융합 폴리펩티드(Fc 놉) EVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSDIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
156 제2 융합 폴리펩티드(Fc 홀) EVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSDIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
조립된 구조의 개략도는 도 1E에 도시되어 있다(OX40이 CD40으로 대체됨).
8.2 FAP(4B9)-CD40 컨터체 P1AE1902의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(CD40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(CD40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(CD40)-CH1, (G4S)2 연결자, IgG1 경첩, (G4S)2 연결자, VL(CD40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 33은 이중특이성 항체 P1AE1902의 아미노산 서열을 나타낸다.
P1AE1902의 서열번호
서열번호 설명 서열
157 제1 융합 폴리펩티드(Fc 놉) EVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSDIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
158 제2 융합 폴리펩티드(Fc 홀) EVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSDIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
8.3 FAP( 4B9 )-CD40 컨터체 P1AE1800의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1융합 폴리펩티드(N-말단으로부터 C-말단으로) VH(CD40)-CH1, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(CD40)-C카파, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로) VL(CD40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VH(CD40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 34는 이중특이성 항체 P1AE1800의 아미노산 서열을 나타낸다.
P1AE1800의 서열
서열번호 설명 서열
159 제1 융합 폴리펩티드(Fc 놉) EVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSDIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
160 제2 융합 폴리펩티드(Fc 홀) DIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
8.4 FAP( 4B9 )-CD40 컨터체 P1AE2052의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단): VL(CD40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VH(CD40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(CD40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VH(CD40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 35는 이중특이성 항체 P1AE2052의 아미노산 서열을 나타낸다.
P1AE2052의 서열
서열번호 설명 서열
161 제1 융합 폴리펩티드(Fc 놉) DIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
162 제2 융합 폴리펩티드(Fc 홀) DIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
8.5 FAP( 4B9 )-CD40 컨터체 P1AE 1901의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(CD40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VH(CD40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VL(CD40)-C카파, (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VH(CD40)-CH1, GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)).
하기 표 36은 이중특이성 항체 P1AE1901의 아미노산 서열을 나타낸다.
P1AE1901의 서열
서열번호 설명 서열
163 제1 융합 폴리펩티드(Fc 놉) DIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
164 제2 융합 폴리펩티드(Fc 홀) DIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSCGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
8.6 FAP( 4B9 )-CD40 컨터체 P1AE2255의 제조
2개의 융합 폴리펩티드를 포함하는 이중특이성 합체를 하기와 같이 클로닝하였다:
- 제1 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(CD40)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 놉, (G4S)2 연결자, VL(CD40)-C카파_RK(E123R, Q124K), GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VH(FAP)-C카파.
- 제2 융합 폴리펩티드(N-말단으로부터 C-말단으로): VH(CD40)-CH1_EE(K147E, K213E), (G4S)2 연결자, IgG1 경첩, Fc 홀, (G4S)2 연결자, VL(CD40)-C카파_RK(E123R, Q124K), GGGGSGGGGSGGGSGGGGS(서열번호 84) 연결자, VL(FAP)-CH1.
Pro329Gly, Leu234Ala 및 Leu235Ala 돌연변이를 놉 및 홀 중쇄의 불변부에 도입하여 WO 2012/130831에 기재된 방법에 따라 Fc 감마 수용체에 대한 결합을 제거하였다. 놉 인투 홀 이종이량체화 기술을 놉 쇄의 CH3 도메인의 S354C/T366W 및상응하는 홀 쇄의 CH3 도메인의 Y349C/T366S/L368A/Y407V 돌연변이에 의해 사용하였다(문헌[Carter, J Immunol Methods 248, 7-15 (2001)). 또한, OX40의 VL 및 VH에 융합된 CH 및 C카파에서, 아미노산(이른바 하전된 잔기)을 도입하여 벤스 존스 단백질의 생성을 억제하고 정확한 짝지음, 즉 항-OX40 결합자 49B4의 CH1 도메인(K147E 및 K213E, 카밧 EU에 따른 번호부여)의 음전하 및 CL 도메인(E123R 및 Q124K, 카밧 EU에 따른 번호부여)의 양전하를 더욱 용이하게 하였다.
하기 표 37은 이중특이성 항체 P1AE2255의 아미노산 서열을 나타낸다.
P1AE2255의 서열
서열번호 설명 서열
165 제1 융합 폴리펩티드(Fc 놉) EVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVEDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDEKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVYTLPPCRDELTKNQVSLWCLVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLYSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSDIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDRKLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEVQLLESGGGLVQPGGSLRLSCAASGFTFSSYAMSWVRQAPGKGLEWVSAIIGSGASTYYADSVKGRFTISRDNSKNTLYLQMNSLRAEDTAVYYCAKGWFGGFNYWGQGTLVTVSSASVAAPSVFIFPPSDEQLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGEC
166 제2 융합 폴리펩티드(Fc 홀) EVQLLESGGGLVQPGGSLRLSCAASGYSFTGYYIHWVRQAPGKGLEWVGRVIPNAGGTSYNQKFKGRFTISVDNSKNTAYLQMNSLRAEDTAVYYCAREGIYWWGQGTTVTVSSASTKGPSVFPLAPSSKSTSGGTAALGCLVEDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDEKVEPKSCGGGGSGGGGSDKTHTCPPCPAPEAAGGPSVFLFPPKPKDTLMISRTPEVTCVVVDVSHEDPEVKFNWYVDGVEVHNAKTKPREEQYNSTYRVVSVLTVLHQDWLNGKEYKCKVSNKALGAPIEKTISKAKGQPREPQVCTLPPSRDELTKNQVSLSCAVKGFYPSDIAVEWESNGQPENNYKTTPPVLDSDGSFFLVSKLTVDKSRWQQGNVFSCSVMHEALHNHYTQKSLSLSPGKGGGGSGGGGSDIQMTQSPSSLSASVGDRVTITCRSSQSLVHSNGNTFLHWYQQKPGKAPKLLIYTVSNRFSGVPSRFSGSGSGTDFTLTISSLQPEDFATYFCSQTTHVPWTFGGGTKVEIKRTVAAPSVFIFPPSDRKLKSGTASVVCLLNNFYPREAKVQWKVDNALQSGNSQESVTEQDSKDSTYSLSSTLTLSKADYEKHKVYACEVTHQGLSSPVTKSFNRGECGGGGSGGGGSGGGSGGGGSEIVLTQSPGTLSLSPGERATLSCRASQSVTSSYLAWYQQKPGQAPRLLINVGSRRATGIPDRFSGSGSGTDFTLTISRLEPEDFAVYYCQQGIMLPPTFGQGTKVEIKSSASTKGPSVFPLAPSSKSTSGGTAALGCLVKDYFPEPVTVSWNSGALTSGVHTFPAVLQSSGLYSLSSVVTVPSSSLGTQTYICNVNHKPSNTKVDKKVEPKSC
조립된 구조의 개략도는 도 1L에 도시되어 있다(OX40이 CD40으로 대체됨).
8.7 정제 후 분자의 생화학적 분석
도 38은 FAP-4-1BB 컨터체의 수율 및 최종 단량체 함량을 정리한 것이다.
FAP-4-1BB 컨터체의 생화학적 분석
구조물 단량체
[%]
(SEC)
역가
[mg/L]
컨터체 P1AE1799 100 3.40
컨터체 P1AE1902 100 4.42
컨터체 P1AE1800 98.8 2.44
컨터체 P1AE2052 100 4.06
컨터체 P1AE1901 100 3.60
컨터체 P1AE2255 100 1.82
인간 CD40에 결합하는 이중특이성 구조물의 능력을 SPR에 의해 평가하였다. 모든 SPR 실험을 비아코어 T200(비아코어)에서 25℃에서 HBS-EP를 전개 완충액(0.01 M HEPES pH 7.4, 0.15 M NaCl, 3 mM EDTA, 0.005% 계면활성제 P20)(비아코어)으로서 사용하여 수행하였다. 회합을 인간 CD40 세포외 도메인을 다양한 농도로 300초 동안 30 μL/분의 유속으로 1:3 희석에서 300 nM로 출발하여 주사함으로써 측정하였다. 해리 상을 1200초까지 감시하고 샘플 용액을 전개 완충액으로 전환시킴으로써 유발하였다. 표면은 글리신(pH 2.1)으로 30 μL/분의 유동 속도로 60초 동안 세척함으로써 재생성하였다. 벌크 굴절률 차이는 염소 항-인간 F(ab')2 표면으로부터 수득한 반응을 제함으로써 보정하였다. 맹검 주사도 제하였다(이중 참조). Kd 및 역동학적 매개변수의 계산을 위해, 랭뮤어 1:1 모델을 사용하였다. 명확한 Kd는 비아코어(상표명) B4000 평가 소프트웨어(버전 1.1)를 사용하여 계산하였다.
재조합 인간 CD40_ECD에 대한 이중특이성 CD40xFAP 컨터체의 결합(비아코어)
분자 ka(1/M초) kd(1/초) Kd(M) Rmax(RU) t1/2(초)
컨터체 P1AE1800 1.35E+06 1.27E-02 9.43E-09 5.2 55
컨터체 P1AE1799 9.57E+05 1.51E-02 1.57E-08 10.7 46
컨터체 P1AE1901 9.91E+05 6.92E-03 6.98E-09 12.3 100
컨터체 P1AE1902 7.76E+05 1.45E-02 1.87E-08 9.9 48
컨터체 P1AE2052 9.45E+05 6.81E-03 7.20E-09 10.9 102
컨터체 P1AE2255 9.18E+05 1.59E-02 1.73E-08 14.2 44
9.2 인간 OX40에 대한 결합(역동학적 친화도)
인간 FAP에 대한 이중특이성 FAP-OX40 항체의 결합을 비아코어 T100 계기(지이 헬스케어)를 사용하여 SPR에 의해 조사하였다. 포획 시스템(15 μg 항-인간 IgG(Fc); 오더 코드: 28995056; 스웨덴 소재의 지이 헬스케어 바이오-사이언스 아베)의 약 12,000개의 공명 단위(RU)를 지이 헬스케어에서 공급되는 아민 커플링 키트를 사용하여 pH 4.5에서 CM5 칩(지이 헬스케어 BR-1005-30)에 커플링하였다. 전개 완충액은 HBS-N(pH 7.4, 10 mM HEPES, 150 mM NaCl, pH 7.4, 지이 헬스케어)이였다. 후속의 역동학적 특성규명의 경우, 전개 완충액은 PBS-P(pH 7.4, 20 mM 포스페이트 완충액, 2.7 mM KCl, 137 mM NaCl, 0.05% 계면활성제 P20)였다. 유동 세포를 25℃로 설정하고, 샘플 블럭을 12℃로 설정하고 전개 완충액으로 2회 프라이밍하였다. 재조합 FAP를 5 μL/분의 유동 속도로 60초 동안 25 μg/mL 용액으로 주사함으로써 포획하였다. 회합은 1:2 희석액 중 이중특이성 항체를 300 nM로 시작하여 30 μL/분의 유동 속도로 120초 동안 주입함으로써 측정하였다. 해리 상을 720초까지 감시하고 샘플 용액을 전개 완충액으로 전환시킴으로써 유발하였다. 표면은 10 mM 글리신(pH 1.5)으로 30 μL/분의 유동 속도로 60초 동안 세척함으로써 재생성하였다. 벌크 굴절률 차이는 항-히스티딘 표면으로부터 수득한 반응을 제함으로써 보정하였다. 맹검 주사도 제하였다(이중 참조). Kd 및 역동학적 매개변수의 계산을 위해, 랭뮤어 1:1 모델을 사용하였다.
재조합 인간 FAP에 대한 항-FAP/항-CD40 항체의 결합
분자 ka(1/M초) kd(1/초) Kd(M) Rmax(RU) t1/2(초)
컨터체 P1AE1800 8.57E+04 7.78E-04 9.07E-09 18.4 891
컨터체 P1AE1799 5.53E+04 2.53E-04 4.58E-09 28.9 2741
컨터체 P1AE1901 3.82E+04 2.69E-04 7.05E-09 32.0 2578
컨터체 P1AE1902 5.41E+04 2.88E-04 5.33E-09 26.0 2405
컨터체 P1AE2052 3.56E+04 2.96E-04 8.31E-09 28.2 2345
컨터체 P1AE2255 5.28E+04 2.35E-04 4.44E-09 36.7 2955
9.3 인간 CD40 및 인간 FAP에 대한 동시 결합(역동학적 친화도)
또한, 인간 CD40 및 인간 FAP에 대한 FAP-OX40 항체의 결합 능력을 비아코어 T100 계기(지이 헬스케어)를 사용하여 SPR에 의해 조사하였다. 포획 시스템(20 μg 항-인간 IgG(Fc); 오더 코드: BR100839; 스웨덴 소재의 지이 헬스케어 바이오-사이언스 아베)의 약 8,000개의 공명 단위(RU)를 지이 헬스케어에서 공급되는 아민 커플링 키트를 사용하여 pH 5.0에서 CM5 칩(지이 헬스케어 BR-1005-30)에 커플링하였다. 전개 완충액은 PBS-P(pH 7.4, 20 mM 포스페이트 완충액, 2.7 mM KCl, 137 mM NaCl, 0.05% 계면활성제 P20)였다. 유동 세포를 25℃로 설정하고, 샘플 블럭을 12℃로 설정하고 전개 완충액으로 2회 프라이밍하였다. 재조합 FAP를 5 μL/분의 유동 속도로 60초 동안 2 μg/mL 용액으로 주사함으로써 포획하였다. 회합은 제1 분석물(인간 CD40 또는 인간 FAP)을 30 μL/분의 유동 속도로 120초 동안 주입함으로써 측정하였다. 이어서, 제2 분석물(인간 FAP 또는 인간 CD40)을 30 μL/분의 유동 속도로 120초 동안 주입하였다. 해리 상을 720초까지 감시하고 샘플 용액을 전개 완충액으로 전환시킴으로써 유발하였다. 표면은 3 M MgCl2로 10 μL/분의 유동 속도로 60초 동안 세척함으로써 재생성하였다. 벌크 굴절률 차이는 항-인간 IgG(Fc) 표면으로부터 수득한 반응을 제함으로써 보정하였다. 맹검 주사도 제하였다(이중 참조). Kd 및 역동학적 매개변수의 계산을 위해, 랭뮤어 1:1 모델을 사용하였다. 모든 FAP-CD40 컨터체는 항원 둘다에 동시에 독립적으로 결합할 수 있었다.
실시예 10
FAP 표적화된 항-인간 CD40 항원 결합 분자의 기능적 특성
10.1 항원의 출처로서 FAP -코팅된 다이나비드(등록상표)를 사용한 FAP 표적 화된 항-인간 CD40 결합 분자에 의한 인간 B 세포의 활성화
B 세포를 슈티프퉁 취리히 브러츠펜데다이엔스트 에스알케이(Stiftung Zurcher Blutspendedienst SRK)로부터 입수한 연층으로부터 단리하였다. PBMC를 단리하기 위해, 50 mL의 연층을 동일 부피의 PBS(기브코, 카탈로그 번호 100010023) 중에 희석하였다. 50 mL의 폴리프로필렌 원심분리 관(TPP, 카탈로그 번호 91050)을 15 mL의 림포프렙(Lymphoprep: 상표명)(스템셀 테크놀러지스, 카탈로그 번호 07851)으로 보충하고, 하나의 관마다 25 mL의 연층 용액을 상기 림포프렙(상표명) 위에 조심스럽게 적층하였다. 상기 관을 2,000 rpm으로 24분 동안 실온에서 저 가속으로 중단 없이 원심분리하였다. 이어서, PBMC를 계면으로부터 수집하고 PBS로 3회 세척하고 10 mL의 PBMC중에 재현탁시키고, 세포를 세포 유형 및 수에 대해 벡멘 콜터 세포 계수기 Ac·T(Beckman Coulter cell counter Ac·T: 상표명) 5diff OV(벡맨 콜터, 카탈로그 번호 6605580)로 분석하였다. PBMC로부터 B 세포 단리에 앞서, CD14 양성 분획을 CD14 양성 세포를 CD14 마이크로 비드(밀텐이(Miltenyi, 카탈로그 번호 130-050-201)로 자성 표지함으로써 제거하고 오토맥스(autoMACS: 등록상표) 프로 세퍼레이터(Pro Separator)(밀텐이, 카탈로그 번호 130-092-545)를 사용하여 후속으로 단리하였다. CD14 음성 분획을 밀텐이 B 세포 단리 키트 II(카탈로그 번호 130-091-151) 및 오토맥스(등록상표) 분리에 의한 후속의 B 세포 단리에 사용하였다. 10%(v/v) FPB(라이프 테크놀로지스, 카탈로그 번호 16140, Lot 번호 1797306A), 1%(v/v) 페니실린/스트렙토마이신(기브코, 카탈로그 번호 15070-063), 1%(v/v) L-글루타민(기브코, 카탈로그 번호 25030-024), 1 %(v/v) 나트륨 피루베이트(기브코, 카탈로그 번호 11360-039), 1 %(v/v) MEM 비필수 아미노산(기브코, 카탈로그 번호 11140-035) 및 50 μM β-머탑토에탄올(기브코, 카탈로그 번호 31350-010)로 보충된 RPMI 배지 1640(기브코, 카탈로그 번호 31870-025)로 이루어진 100 μL의 R10 배지 1x10⁵개의 B 세포를 96-웰 편평바닥 플레이트마다 첨가하였다. 스트렙타비딘 다이나비드(등록상표)(터모피셔 사이언티픽(ThermoFisher Scientific), 카탈로그 번호 11205D)를 비오틴일화된 인간 FAP(인하우스 제조됨, 6.5x10⁴개 비드:0.1 μg의 단백질의 결합 능력)로 제조자의 프로토콜에 따라 코팅하고 50 μL의 R10 매질 중 B 세포에 2:1의 비드 대 세포 비로 첨가하였다. 대조군으로서 비코팅된 비드를 상기 B 세포에 첨가하였다.
FAP 표적화된 항-인간 CD40 컨터체를 50 μL의 R10 매질에서 상기 B 세포에 0.003 내지 6.7 nM(3x연속희석)의 농도로 참가하였다. 양성 FAP 의존성 대조군으로서 작용성 항-인간 CD40 항체 SGN40(IgG1, INN: 다세투주맙(Dacetuzumab))을 사용하였다. SGN40 항체가 생체활성을 위해 Fc 수용체 가교결합을 요함이 문헌[C. Law et al., Cancer Res 2005, 65, 8331-8338]에 기재되어 있음에 기인하여, 항체를 가교결합 염소 항-인간 IgG Fcγ 단편 특이성 F(ab')2 단편(잭슨 이뮤노 리서치, 카탈로그 번호 109-006-008)을 사용하여 30분 동안 항온배양한 후, 상기 B 세포에 참가하였다. 48시간 후, 세포를 96-웰 둥근바닥 플레이트에 첨가하고 PBS로 1회 세척하고 PBS 중 50 μL의 Fc 수용체 차단 마우스 IgG 동종 대조군(3 μg/mL, 터모피셔 사이언티픽, 카탈로그 번호 10400C)을 사용하여 항온배양하였다. 4℃의 항온배양 15분 후, 세포를 PBS로 세척하고 PBS 중 형광표지된 항체의 혼합물(50 μL)을 상기 세포에 첨가하였다. 하기 형광표지된 항체를 사용하였다: 항-인간 CD80 BV605(비디 바이오사이언시스, 클론 L307.4, 카탈로그 번호 563315), 항-인간 CD69 알렉사 플루오르(Alexa Fluor: 등록상표) 488(바이오레전드, 클론 FN50, 카탈로그 번호 310916), 항-인간 CD14 PerCP-Cy5.5(바이오레전드, 클론 HCD14, 카탈로그 번호 325622), 항-인간 CD3 PerCP-Cy5.5(바이오레전드, 클론 UCHT1, 카탈로그 번호 300430), 항-인간 CD86 PE-CF594(비디 바이오사이언시스, 클론 FUN-1, 카탈로그 번호 562390), 항-HLA-DR BUV395(비디 바이오사이언시스, 클론 G46-6, 카탈로그 번호 564040) 및 항-인간 CD19 APC-H7(비디 바이오사이언시스, 클론 SJ25C1, 카탈로그 번호 560177). 생존 세포와 사멸 세포간의 구별을 위해, 생존성 염색제 좀비 아쿠아(Zombie Aqua: 상표명)(바이오레전드 카탈로그 번호 423102)를 상기 항체 혼합물에 첨가하였다. 4℃의 항온배양 30분 후, 세포를 PBS로 2회 세척하고 200 μL의 PBS 중 재현탁시켰다. 동일한 날, 세포를 5-레이저-LSR-포르테사(비디 바이오사이언시스의 디바 소프트웨어)를 사용하여 분석하였다. 데이터 분석은 플로우조(FlowJo) 버전 10 소프트웨어(플로우조 엘엘씨(FlowJo LLC))를 사용하여 수행하였다. 생존(아쿠아 음성) 세포(CD14 및 CD3에 대해 음성이고 CD19에 대해 양성임)를 CD69, CD80, CD86 및 HLA-DR 발현에 대해 분석하였다.
2일 후, 작용성 항-CD40 컨터체 또는 가교결합된 SGN40 항체에 의해 분석된 B 세포는 모든 시험된 구조물에서 CD69, CD80, CD86 및 HLA-DR 발현의 증가를 나타냈다(도 24a 내지 24h 참고). 이러한 발현 마커의 상향조절은 상이한 FAP 표적화된 컨터체의 경우 FAP에 의존적이었고, FAP 의존성 항체에 의해 유도된 발현의 증가는 가교결합된 SGN40 항체에 의해 유도된 증가와 비등하거나 이보다 약간 더 작았다.
SEQUENCE LISTING <110> F. Hoffmann-La Roche AG <120> Bispecific 2+1 Contorsbodies <130> P34510-WO <140> PCT/EP2018/079785 <141> 2018-10-31 <150> EP 17199537.6 <151> 2017-11-01 <160> 184 <170> PatentIn version 3.5 <210> 1 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) CDR-H1 <400> 1 Ser Tyr Ala Met Ser 1 5 <210> 2 <211> 17 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) CDR-H2 <400> 2 Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys 1 5 10 15 Gly <210> 3 <211> 8 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) CDR-H3 <400> 3 Gly Trp Phe Gly Gly Phe Asn Tyr 1 5 <210> 4 <211> 12 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) CDR-L1 <400> 4 Arg Ala Ser Gln Ser Val Ser Arg Ser Tyr Leu Ala 1 5 10 <210> 5 <211> 7 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) CDR-L2 <400> 5 Val Gly Ser Arg Arg Ala Thr 1 5 <210> 6 <211> 9 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) CDR-L3 <400> 6 Gln Gln Gly Ile Met Leu Pro Pro Thr 1 5 <210> 7 <211> 117 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) VH <400> 7 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu 100 105 110 Val Thr Val Ser Ser 115 <210> 8 <211> 108 <212> PRT <213> Artificial Sequence <220> <223> FAP(4B9) VL <400> 8 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro 85 90 95 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 9 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) CDR-H1 <400> 9 Ser His Ala Met Ser 1 5 <210> 10 <211> 16 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) CDR-H2 <400> 10 Ala Ile Trp Ala Ser Gly Glu Gln Tyr Tyr Ala Asp Ser Val Lys Gly 1 5 10 15 <210> 11 <211> 8 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) CDR-H3 <400> 11 Gly Trp Leu Gly Asn Phe Asp Tyr 1 5 <210> 12 <211> 12 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) CDR-L1 <400> 12 Arg Ala Ser Gln Ser Val Ser Arg Ser Tyr Leu Ala 1 5 10 <210> 13 <211> 7 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) CDR-L2 <400> 13 Gly Ala Ser Thr Arg Ala Thr 1 5 <210> 14 <211> 9 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) CDR-L3 <400> 14 Gln Gln Gly Gln Val Ile Pro Pro Thr 1 5 <210> 15 <211> 116 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) VH <400> 15 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser His 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Trp Ala Ser Gly Glu Gln Tyr Tyr Ala Asp Ser Val Lys 50 55 60 Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu 65 70 75 80 Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala 85 90 95 Lys Gly Trp Leu Gly Asn Phe Asp Tyr Trp Gly Gln Gly Thr Leu Val 100 105 110 Thr Val Ser Ser 115 <210> 16 <211> 108 <212> PRT <213> Artificial Sequence <220> <223> FAP(28H1) VL <400> 16 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Ser Arg Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Ile Gly Ala Ser Thr Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Gln Val Ile Pro 85 90 95 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 17 <211> 5 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9,49B4,1G4, 20B7) CDR-H1 <400> 17 Ser Tyr Ala Ile Ser 1 5 <210> 18 <211> 5 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563, CLC-564, 17A9) CDR-H1 <400> 18 Ser Tyr Ala Met Ser 1 5 <210> 19 <211> 17 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9,49B4,1G4, 20B7) CDR-H2 <400> 19 Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln 1 5 10 15 Gly <210> 20 <211> 17 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563, CLC-564, 17A9) CDR-H2 <400> 20 Ala Ile Ser Gly Ser Gly Gly Ser Thr Tyr Tyr Ala Asp Ser Val Lys 1 5 10 15 Gly <210> 21 <211> 7 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9) CDR-H3 <400> 21 Glu Tyr Gly Trp Met Asp Tyr 1 5 <210> 22 <211> 9 <212> PRT <213> Artificial sequence <220> <223> OX40(49B4) CDR-H3 <400> 22 Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr 1 5 <210> 23 <211> 7 <212> PRT <213> Artificial sequence <220> <223> OX40(1G4) CDR-H3 <400> 23 Glu Tyr Gly Ser Met Asp Tyr 1 5 <210> 24 <211> 13 <212> PRT <213> Artificial sequence <220> <223> OX40(20B7) CDR-H3 <400> 24 Val Asn Tyr Pro Tyr Ser Tyr Trp Gly Asp Phe Asp Tyr 1 5 10 <210> 25 <211> 7 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563) CDR-H3 <400> 25 Asp Val Gly Ala Phe Asp Tyr 1 5 <210> 26 <211> 7 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-564) CDR-H3 <400> 26 Asp Val Gly Pro Phe Asp Tyr 1 5 <210> 27 <211> 11 <212> PRT <213> Artificial sequence <220> <223> OX40(17A9)-CDR-H3 <400> 27 Val Phe Tyr Arg Gly Gly Val Ser Met Asp Tyr 1 5 10 <210> 28 <211> 11 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9,49B4,1G4, 20B7) CDR-L1 <400> 28 Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala 1 5 10 <210> 29 <211> 12 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563, CLC564) CDR-L1 <400> 29 Arg Ala Ser Gln Ser Val Ser Ser Ser Tyr Leu Ala 1 5 10 <210> 30 <211> 11 <212> PRT <213> Artificial sequence <220> <223> OX40(17A9) CDR-L1 <400> 30 Gln Gly Asp Ser Leu Arg Ser Tyr Tyr Ala Ser 1 5 10 <210> 31 <211> 7 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9,49B4,1G4, 20B7) CDR-L2 <400> 31 Asp Ala Ser Ser Leu Glu Ser 1 5 <210> 32 <211> 7 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563, CLC564) CDR-L2 <400> 32 Gly Ala Ser Ser Arg Ala Thr 1 5 <210> 33 <211> 7 <212> PRT <213> Artificial sequence <220> <223> OX40(17A9) CDR-L2 <400> 33 Gly Lys Asn Asn Arg Pro Ser 1 5 <210> 34 <211> 10 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9) CDR-L3 <400> 34 Gln Gln Tyr Leu Thr Tyr Ser Arg Phe Thr 1 5 10 <210> 35 <211> 9 <212> PRT <213> Artificial sequence <220> <223> OX40(49B4) CDR-L3 <400> 35 Gln Gln Tyr Ser Ser Gln Pro Tyr Thr 1 5 <210> 36 <211> 10 <212> PRT <213> Artificial sequence <220> <223> OX40(1G4) CDR-L3 <400> 36 Gln Gln Tyr Ile Ser Tyr Ser Met Leu Thr 1 5 10 <210> 37 <211> 9 <212> PRT <213> Artificial sequence <220> <223> OX40(20B7) CDR-L3 <400> 37 Gln Gln Tyr Gln Ala Phe Ser Leu Thr 1 5 <210> 38 <211> 9 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563, CLC-164) CDR-L3 <400> 38 Gln Gln Tyr Gly Ser Ser Pro Leu Thr 1 5 <210> 39 <211> 10 <212> PRT <213> Artificial sequence <220> <223> OX40(17A9) CDR-L3 <400> 39 Asn Ser Arg Val Met Pro His Asn Arg Val 1 5 10 <210> 40 <211> 116 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9) VH <400> 40 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Gly Trp Met Asp Tyr Trp Gly Gln Gly Thr Thr Val 100 105 110 Thr Val Ser Ser 115 <210> 41 <211> 108 <212> PRT <213> Artificial sequence <220> <223> OX40(8H9) VL <400> 41 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Leu Thr Tyr Ser Arg 85 90 95 Phe Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 42 <211> 118 <212> PRT <213> Artificial sequence <220> <223> OX40(49B4) VH <400> 42 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser 115 <210> 43 <211> 107 <212> PRT <213> Artificial sequence <220> <223> OX40(49B4) VL <400> 43 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 44 <211> 116 <212> PRT <213> Artificial sequence <220> <223> OX40(1G4) VH <400> 44 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Gly Ser Met Asp Tyr Trp Gly Gln Gly Thr Thr Val 100 105 110 Thr Val Ser Ser 115 <210> 45 <211> 108 <212> PRT <213> Artificial sequence <220> <223> OX40(1G4) VL <400> 45 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ile Ser Tyr Ser Met 85 90 95 Leu Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 46 <211> 122 <212> PRT <213> Artificial sequence <220> <223> OX40(20B7) VH <400> 46 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Val Asn Tyr Pro Tyr Ser Tyr Trp Gly Asp Phe Asp Tyr Trp 100 105 110 Gly Gln Gly Thr Thr Val Thr Val Ser Ser 115 120 <210> 47 <211> 107 <212> PRT <213> Artificial sequence <220> <223> OX40(20B7) VL <400> 47 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Gln Ala Phe Ser Leu 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 48 <211> 116 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563) VH <400> 48 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Ser Gly Ser Gly Gly Ser Thr Tyr Tyr Ala Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Leu Asp Val Gly Ala Phe Asp Tyr Trp Gly Gln Gly Ala Leu Val 100 105 110 Thr Val Ser Ser 115 <210> 49 <211> 108 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-563) VL <400> 49 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Ser Ser Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Tyr Gly Ala Ser Ser Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Tyr Gly Ser Ser Pro 85 90 95 Leu Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 50 <211> 116 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-564) VH <400> 50 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Ser Gly Ser Gly Gly Ser Thr Tyr Tyr Ala Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Phe Asp Val Gly Pro Phe Asp Tyr Trp Gly Gln Gly Thr Leu Val 100 105 110 Thr Val Ser Ser 115 <210> 51 <211> 108 <212> PRT <213> Artificial sequence <220> <223> OX40(CLC-564) VL <400> 51 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Ser Ser Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Tyr Gly Ala Ser Ser Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Tyr Gly Ser Ser Pro 85 90 95 Leu Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 <210> 52 <211> 120 <212> PRT <213> Artificial sequence <220> <223> OX40(17A9) VH <400> 52 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Ser Gly Ser Gly Gly Ser Thr Tyr Tyr Ala Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Val Phe Tyr Arg Gly Gly Val Ser Met Asp Tyr Trp Gly Gln 100 105 110 Gly Thr Leu Val Thr Val Ser Ser 115 120 <210> 53 <211> 106 <212> PRT <213> Artificial sequence <220> <223> OX40(17A9) VL <400> 53 Ser Ser Glu Leu Thr Gln Asp Pro Ala Val Ser Val Ala Leu Gly Gln 1 5 10 15 Thr Val Arg Ile Thr Cys Gln Gly Asp Ser Leu Arg Ser Tyr Tyr Ala 20 25 30 Ser Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Val Leu Val Ile Tyr 35 40 45 Gly Lys Asn Asn Arg Pro Ser Gly Ile Pro Asp Arg Phe Ser Gly Ser 50 55 60 Ser Ser Gly Asn Thr Ala Ser Leu Thr Ile Thr Gly Ala Gln Ala Glu 65 70 75 80 Asp Glu Ala Asp Tyr Tyr Cys Asn Ser Arg Val Met Pro His Asn Arg 85 90 95 Val Phe Gly Gly Gly Thr Lys Leu Thr Val 100 105 <210> 54 <211> 916 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) CD134-0093 <400> 54 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val 690 695 700 Gln Pro Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr 705 710 715 720 Phe Ser Ser Tyr Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly 725 730 735 Leu Glu Trp Val Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr 740 745 750 Ala Asp Ser Val Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys 755 760 765 Asn Thr Leu Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala 770 775 780 Val Tyr Tyr Cys Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly 785 790 795 800 Gln Gly Thr Leu Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser 805 810 815 Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala 820 825 830 Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val 835 840 845 Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser 850 855 860 Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr 865 870 875 880 Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys 885 890 895 Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn 900 905 910 Arg Gly Glu Cys 915 <210> 55 <211> 905 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) CD134-0093 <400> 55 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser 690 695 700 Leu Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser 705 710 715 720 Val Thr Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala 725 730 735 Pro Arg Leu Leu Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro 740 745 750 Asp Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 755 760 765 Ser Arg Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly 770 775 780 Ile Met Leu Pro Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 785 790 795 800 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 805 810 815 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys 820 825 830 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 835 840 845 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 850 855 860 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 865 870 875 880 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 885 890 895 Asp Lys Lys Val Glu Pro Lys Ser Cys 900 905 <210> 56 <211> 910 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) CD134-0094 <400> 56 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile 115 120 125 Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val 130 135 140 Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys 145 150 155 160 Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu 165 170 175 Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu 180 185 190 Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr 195 200 205 His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu 210 215 220 Cys Asp Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His 225 230 235 240 Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val 245 250 255 Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr 260 265 270 Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu 275 280 285 Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys 290 295 300 Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser 305 310 315 320 Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys 325 330 335 Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile 340 345 350 Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro 355 360 365 Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu 370 375 380 Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn 385 390 395 400 Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser 405 410 415 Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg 420 425 430 Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu 435 440 445 His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly 450 455 460 Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser 465 470 475 480 Pro Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys 485 490 495 Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys 500 505 510 Pro Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu 515 520 525 Ser Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe 530 535 540 Thr Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr 545 550 555 560 Cys Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys 565 570 575 Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 580 585 590 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 595 600 605 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 610 615 620 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 625 630 635 640 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 645 650 655 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 660 665 670 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 675 680 685 Gly Ser Gly Gly Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Gly 690 695 700 Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala 705 710 715 720 Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro 725 730 735 Gly Gln Ala Pro Arg Leu Leu Ile Asn Val Gly Ser Arg Arg Ala Thr 740 745 750 Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr 755 760 765 Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys 770 775 780 Gln Gln Gly Ile Met Leu Pro Pro Thr Phe Gly Gln Gly Thr Lys Val 785 790 795 800 Glu Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 805 810 815 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 820 825 830 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 835 840 845 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 850 855 860 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 865 870 875 880 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 885 890 895 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 900 905 910 <210> 57 <211> 915 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) CD134-0094 <400> 57 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile 115 120 125 Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val 130 135 140 Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys 145 150 155 160 Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu 165 170 175 Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu 180 185 190 Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr 195 200 205 His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu 210 215 220 Cys Asp Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His 225 230 235 240 Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val 245 250 255 Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr 260 265 270 Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu 275 280 285 Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys 290 295 300 Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser 305 310 315 320 Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys 325 330 335 Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile 340 345 350 Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro 355 360 365 Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala 370 375 380 Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn 385 390 395 400 Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser 405 410 415 Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg 420 425 430 Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu 435 440 445 His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly 450 455 460 Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser 465 470 475 480 Pro Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys 485 490 495 Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys 500 505 510 Pro Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu 515 520 525 Ser Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe 530 535 540 Thr Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr 545 550 555 560 Cys Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys 565 570 575 Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 580 585 590 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 595 600 605 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 610 615 620 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 625 630 635 640 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 645 650 655 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 660 665 670 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 675 680 685 Gly Ser Gly Gly Gly Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly 690 695 700 Gly Leu Val Gln Pro Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser 705 710 715 720 Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser Trp Val Arg Gln Ala Pro 725 730 735 Gly Lys Gly Leu Glu Trp Val Ser Ala Ile Ile Gly Ser Gly Ala Ser 740 745 750 Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg Phe Thr Ile Ser Arg Asp 755 760 765 Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu 770 775 780 Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly Trp Phe Gly Gly Phe Asn 785 790 795 800 Tyr Trp Gly Gln Gly Thr Leu Val Thr Val Ser Ser Ala Ser Thr Lys 805 810 815 Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly 820 825 830 Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro 835 840 845 Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr 850 855 860 Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val 865 870 875 880 Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn 885 890 895 Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro 900 905 910 Lys Ser Cys 915 <210> 58 <211> 924 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE0085 <400> 58 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser His Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Trp Ala Ser Gly Glu Gln Tyr Tyr Ala Asp Ser Val Lys Gly Arg Phe 755 760 765 Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met Asn 770 775 780 Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly Trp 785 790 795 800 Leu Gly Asn Phe Asp Tyr Trp Gly Gln Gly Thr Leu Val Thr Val Ser 805 810 815 Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp 820 825 830 Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn 835 840 845 Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu 850 855 860 Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp 865 870 875 880 Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr 885 890 895 Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser 900 905 910 Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 <210> 59 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE0085 <400> 59 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Ser Arg Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Ile Gly 740 745 750 Ala Ser Thr Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Gln Val Ile Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 60 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE0086 <400> 60 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 61 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE0086 <400> 61 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val 740 745 750 Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 62 <211> 919 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE0087 <400> 62 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile 115 120 125 Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val 130 135 140 Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys 145 150 155 160 Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu 165 170 175 Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu 180 185 190 Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr 195 200 205 His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu 210 215 220 Cys Asp Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His 225 230 235 240 Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val 245 250 255 Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr 260 265 270 Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu 275 280 285 Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys 290 295 300 Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser 305 310 315 320 Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys 325 330 335 Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile 340 345 350 Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro 355 360 365 Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu 370 375 380 Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn 385 390 395 400 Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser 405 410 415 Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg 420 425 430 Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu 435 440 445 His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly 450 455 460 Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser 465 470 475 480 Pro Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys 485 490 495 Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys 500 505 510 Pro Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu 515 520 525 Ser Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe 530 535 540 Thr Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr 545 550 555 560 Cys Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys 565 570 575 Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 580 585 590 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 595 600 605 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 610 615 620 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 625 630 635 640 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 645 650 655 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 660 665 670 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 675 680 685 Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser 690 695 700 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 705 710 715 720 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Ser Arg Ser 725 730 735 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 740 745 750 Ile Ile Gly Ala Ser Thr Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 755 760 765 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 770 775 780 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Gln Val Ile Pro 785 790 795 800 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala 805 810 815 Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser 820 825 830 Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu 835 840 845 Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser 850 855 860 Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu 865 870 875 880 Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val 885 890 895 Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys 900 905 910 Ser Phe Asn Arg Gly Glu Cys 915 <210> 63 <211> 923 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE0087 <400> 63 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile 115 120 125 Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val 130 135 140 Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys 145 150 155 160 Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu 165 170 175 Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu 180 185 190 Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr 195 200 205 His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu 210 215 220 Cys Asp Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His 225 230 235 240 Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val 245 250 255 Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr 260 265 270 Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu 275 280 285 Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys 290 295 300 Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser 305 310 315 320 Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys 325 330 335 Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile 340 345 350 Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro 355 360 365 Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala 370 375 380 Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn 385 390 395 400 Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser 405 410 415 Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg 420 425 430 Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu 435 440 445 His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly 450 455 460 Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser 465 470 475 480 Pro Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys 485 490 495 Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys 500 505 510 Pro Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu 515 520 525 Ser Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe 530 535 540 Thr Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr 545 550 555 560 Cys Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys 565 570 575 Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 580 585 590 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 595 600 605 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 610 615 620 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 625 630 635 640 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 645 650 655 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 660 665 670 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 675 680 685 Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser 690 695 700 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 705 710 715 720 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser His 725 730 735 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 740 745 750 Ser Ala Ile Trp Ala Ser Gly Glu Gln Tyr Tyr Ala Asp Ser Val Lys 755 760 765 Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu 770 775 780 Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala 785 790 795 800 Lys Gly Trp Leu Gly Asn Phe Asp Tyr Trp Gly Gln Gly Thr Leu Val 805 810 815 Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala 820 825 830 Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu 835 840 845 Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly 850 855 860 Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser 865 870 875 880 Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu 885 890 895 Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr 900 905 910 Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys 915 920 <210> 64 <211> 919 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE0839 <400> 64 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile 115 120 125 Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val 130 135 140 Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys 145 150 155 160 Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu 165 170 175 Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu 180 185 190 Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr 195 200 205 His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu 210 215 220 Cys Asp Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His 225 230 235 240 Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val 245 250 255 Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr 260 265 270 Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu 275 280 285 Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys 290 295 300 Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser 305 310 315 320 Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys 325 330 335 Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile 340 345 350 Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro 355 360 365 Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu 370 375 380 Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn 385 390 395 400 Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser 405 410 415 Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg 420 425 430 Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu 435 440 445 His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly 450 455 460 Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser 465 470 475 480 Pro Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys 485 490 495 Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys 500 505 510 Pro Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu 515 520 525 Ser Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe 530 535 540 Thr Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr 545 550 555 560 Cys Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys 565 570 575 Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 580 585 590 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 595 600 605 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 610 615 620 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 625 630 635 640 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 645 650 655 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 660 665 670 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 675 680 685 Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser 690 695 700 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 705 710 715 720 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser 725 730 735 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 740 745 750 Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 755 760 765 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 770 775 780 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro 785 790 795 800 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala 805 810 815 Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser 820 825 830 Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu 835 840 845 Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser 850 855 860 Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu 865 870 875 880 Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val 885 890 895 Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys 900 905 910 Ser Phe Asn Arg Gly Glu Cys 915 <210> 65 <211> 924 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE0839 <400> 65 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile 115 120 125 Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val 130 135 140 Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys 145 150 155 160 Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu 165 170 175 Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu 180 185 190 Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr 195 200 205 His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu 210 215 220 Cys Asp Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His 225 230 235 240 Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val 245 250 255 Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr 260 265 270 Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu 275 280 285 Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys 290 295 300 Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser 305 310 315 320 Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys 325 330 335 Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile 340 345 350 Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro 355 360 365 Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala 370 375 380 Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn 385 390 395 400 Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser 405 410 415 Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg 420 425 430 Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu 435 440 445 His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly 450 455 460 Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser 465 470 475 480 Pro Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys 485 490 495 Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys 500 505 510 Pro Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu 515 520 525 Ser Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe 530 535 540 Thr Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr 545 550 555 560 Cys Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys 565 570 575 Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 580 585 590 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 595 600 605 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 610 615 620 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 625 630 635 640 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 645 650 655 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 660 665 670 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 675 680 685 Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser 690 695 700 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 705 710 715 720 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 725 730 735 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 740 745 750 Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val 755 760 765 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 770 775 780 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 785 790 795 800 Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu 805 810 815 Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu 820 825 830 Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys 835 840 845 Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser 850 855 860 Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser 865 870 875 880 Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser 885 890 895 Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn 900 905 910 Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys 915 920 <210> 66 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE0821 <400> 66 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala 100 105 110 Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly 115 120 125 Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala 130 135 140 Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln 145 150 155 160 Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser 165 170 175 Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr 180 185 190 Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser 195 200 205 Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 210 215 220 Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly 225 230 235 240 Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met 245 250 255 Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His 260 265 270 Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val 275 280 285 His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr 290 295 300 Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly 305 310 315 320 Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile 325 330 335 Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val 340 345 350 Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser 355 360 365 Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu 370 375 380 Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro 385 390 395 400 Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val 405 410 415 Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met 420 425 430 His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser 435 440 445 Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln 450 455 460 Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys 465 470 475 480 Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser 485 490 495 Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile 500 505 510 Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg 515 520 525 Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu 530 535 540 Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu 545 550 555 560 Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr 565 570 575 Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro 580 585 590 Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val 595 600 605 Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala 610 615 620 Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly 625 630 635 640 Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly 645 650 655 Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys 660 665 670 Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 67 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE0821 <400> 67 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala 100 105 110 Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly 115 120 125 Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala 130 135 140 Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln 145 150 155 160 Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser 165 170 175 Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr 180 185 190 Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser 195 200 205 Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 210 215 220 Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly 225 230 235 240 Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met 245 250 255 Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His 260 265 270 Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val 275 280 285 His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr 290 295 300 Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly 305 310 315 320 Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile 325 330 335 Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val 340 345 350 Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser 355 360 365 Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu 370 375 380 Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro 385 390 395 400 Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val 405 410 415 Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met 420 425 430 His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser 435 440 445 Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln 450 455 460 Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys 465 470 475 480 Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser 485 490 495 Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile 500 505 510 Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg 515 520 525 Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu 530 535 540 Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu 545 550 555 560 Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr 565 570 575 Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro 580 585 590 Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val 595 600 605 Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala 610 615 620 Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly 625 630 635 640 Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly 645 650 655 Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys 660 665 670 Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val 740 745 750 Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 68 <211> 583 <212> PRT <213> Artificial Sequence <220> <223> (49B4) VHCH1 Fc knob VH (28H1) (heavy chain 1) <400> 68 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Lys Thr 210 215 220 His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser 225 230 235 240 Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg 245 250 255 Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro 260 265 270 Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala 275 280 285 Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val 290 295 300 Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr 305 310 315 320 Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr 325 330 335 Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu 340 345 350 Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys 355 360 365 Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser 370 375 380 Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp 385 390 395 400 Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser 405 410 415 Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala 420 425 430 Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Gly 435 440 445 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly 450 455 460 Gly Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln 465 470 475 480 Pro Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe 485 490 495 Ser Ser His Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu 500 505 510 Glu Trp Val Ser Ala Ile Trp Ala Ser Gly Glu Gln Tyr Tyr Ala Asp 515 520 525 Ser Val Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr 530 535 540 Leu Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 545 550 555 560 Tyr Cys Ala Lys Gly Trp Leu Gly Asn Phe Asp Tyr Trp Gly Gln Gly 565 570 575 Thr Leu Val Thr Val Ser Ser 580 <210> 69 <211> 575 <212> PRT <213> Artificial Sequence <220> <223> (49B4) VHCH1 Fc hole VL (28H1) (heavy chain 2) <400> 69 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Lys Thr 210 215 220 His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser 225 230 235 240 Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg 245 250 255 Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro 260 265 270 Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala 275 280 285 Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val 290 295 300 Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr 305 310 315 320 Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr 325 330 335 Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu 340 345 350 Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys 355 360 365 Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser 370 375 380 Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp 385 390 395 400 Ser Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser 405 410 415 Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala 420 425 430 Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Gly 435 440 445 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly 450 455 460 Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu 465 470 475 480 Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val 485 490 495 Ser Arg Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro 500 505 510 Arg Leu Leu Ile Ile Gly Ala Ser Thr Arg Ala Thr Gly Ile Pro Asp 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser 530 535 540 Arg Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Gln 545 550 555 560 Val Ile Pro Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 565 570 575 <210> 70 <211> 214 <212> PRT <213> Artificial Sequence <220> <223> (49B4) VLCL-light chain <400> 70 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala 100 105 110 Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly 115 120 125 Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala 130 135 140 Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln 145 150 155 160 Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser 165 170 175 Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr 180 185 190 Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser 195 200 205 Phe Asn Arg Gly Glu Cys 210 <210> 71 <211> 584 <212> PRT <213> Artificial Sequence <220> <223> (49B4) VHCH1 Fc knob VH (4B9) (heavy chain 1) <400> 71 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Lys Thr 210 215 220 His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser 225 230 235 240 Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg 245 250 255 Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro 260 265 270 Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala 275 280 285 Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val 290 295 300 Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr 305 310 315 320 Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr 325 330 335 Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu 340 345 350 Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys 355 360 365 Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser 370 375 380 Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp 385 390 395 400 Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser 405 410 415 Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala 420 425 430 Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Gly 435 440 445 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly 450 455 460 Gly Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln 465 470 475 480 Pro Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe 485 490 495 Ser Ser Tyr Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu 500 505 510 Glu Trp Val Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala 515 520 525 Asp Ser Val Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn 530 535 540 Thr Leu Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val 545 550 555 560 Tyr Tyr Cys Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln 565 570 575 Gly Thr Leu Val Thr Val Ser Ser 580 <210> 72 <211> 575 <212> PRT <213> Artificial Sequence <220> <223> (49B4) VHCH1 Fc hole VL (4B9) (heavy chain 2) <400> 72 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Lys Thr 210 215 220 His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser 225 230 235 240 Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg 245 250 255 Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro 260 265 270 Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala 275 280 285 Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val 290 295 300 Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr 305 310 315 320 Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr 325 330 335 Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu 340 345 350 Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys 355 360 365 Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser 370 375 380 Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp 385 390 395 400 Ser Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser 405 410 415 Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala 420 425 430 Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Gly 435 440 445 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly 450 455 460 Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu 465 470 475 480 Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val 485 490 495 Thr Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro 500 505 510 Arg Leu Leu Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser 530 535 540 Arg Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile 545 550 555 560 Met Leu Pro Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 565 570 575 <210> 73 <211> 582 <212> PRT <213> Artificial Sequence <220> <223> (49B4) VHCH1 Fc knob VH (DP47) (heavy chain 1) <400> 73 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Lys Thr 210 215 220 His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser 225 230 235 240 Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg 245 250 255 Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro 260 265 270 Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala 275 280 285 Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val 290 295 300 Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr 305 310 315 320 Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr 325 330 335 Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu 340 345 350 Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys 355 360 365 Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser 370 375 380 Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp 385 390 395 400 Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser 405 410 415 Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala 420 425 430 Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Gly 435 440 445 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly 450 455 460 Gly Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln 465 470 475 480 Pro Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe 485 490 495 Ser Ser Tyr Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu 500 505 510 Glu Trp Val Ser Ala Ile Ser Gly Ser Gly Gly Ser Thr Tyr Tyr Ala 515 520 525 Asp Ser Val Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn 530 535 540 Thr Leu Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val 545 550 555 560 Tyr Tyr Cys Ala Lys Gly Ser Gly Phe Asp Tyr Trp Gly Gln Gly Thr 565 570 575 Leu Val Thr Val Ser Ser 580 <210> 74 <211> 575 <212> PRT <213> Artificial Sequence <220> <223> (49B4) VHCH1 Fc hole VL (DP47) (heavy chain 2) <400> 74 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Lys Thr 210 215 220 His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser 225 230 235 240 Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg 245 250 255 Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro 260 265 270 Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala 275 280 285 Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val 290 295 300 Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr 305 310 315 320 Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr 325 330 335 Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu 340 345 350 Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys 355 360 365 Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser 370 375 380 Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp 385 390 395 400 Ser Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser 405 410 415 Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala 420 425 430 Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Gly 435 440 445 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly 450 455 460 Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu 465 470 475 480 Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val 485 490 495 Ser Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro 500 505 510 Arg Leu Leu Ile Tyr Gly Ala Ser Ser Arg Ala Thr Gly Ile Pro Asp 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser 530 535 540 Arg Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Tyr Gly 545 550 555 560 Ser Ser Pro Leu Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 565 570 575 <210> 75 <211> 816 <212> PRT <213> Artificial Sequence <220> <223> HC 1(49B4) VHCH1_VHCH1 Fc knob VH (4B9) <400> 75 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Gly Gly 210 215 220 Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln Leu Val Gln Ser Gly 225 230 235 240 Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys Val Ser Cys Lys Ala 245 250 255 Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser Trp Val Arg Gln Ala 260 265 270 Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile Ile Pro Ile Phe Gly 275 280 285 Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg Val Thr Ile Thr Ala 290 295 300 Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu Ser Ser Leu Arg Ser 305 310 315 320 Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu Tyr Tyr Arg Gly Pro 325 330 335 Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr Val Ser Ser Ala Ser 340 345 350 Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr 355 360 365 Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro 370 375 380 Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val 385 390 395 400 His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser 405 410 415 Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile 420 425 430 Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val 435 440 445 Glu Pro Lys Ser Cys Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala 450 455 460 Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro 465 470 475 480 Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val 485 490 495 Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 500 505 510 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 515 520 525 Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln 530 535 540 Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala 545 550 555 560 Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro 565 570 575 Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr 580 585 590 Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser 595 600 605 Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr 610 615 620 Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr 625 630 635 640 Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe 645 650 655 Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys 660 665 670 Ser Leu Ser Leu Ser Pro Gly Gly Gly Gly Gly Ser Gly Gly Gly Gly 675 680 685 Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln Leu Leu 690 695 700 Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg Leu Ser 705 710 715 720 Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser Trp Val 725 730 735 Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile Ile Gly 740 745 750 Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg Phe Thr 755 760 765 Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met Asn Ser 770 775 780 Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly Trp Phe 785 790 795 800 Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val Ser Ser 805 810 815 <210> 76 <211> 807 <212> PRT <213> Artificial Sequence <220> <223> HC 2 (49B4) VHCH1_VHCH1 Fc hole VL (4B9) <400> 76 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Asp Gly Gly 210 215 220 Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln Leu Val Gln Ser Gly 225 230 235 240 Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys Val Ser Cys Lys Ala 245 250 255 Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser Trp Val Arg Gln Ala 260 265 270 Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile Ile Pro Ile Phe Gly 275 280 285 Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg Val Thr Ile Thr Ala 290 295 300 Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu Ser Ser Leu Arg Ser 305 310 315 320 Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu Tyr Tyr Arg Gly Pro 325 330 335 Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr Val Ser Ser Ala Ser 340 345 350 Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr 355 360 365 Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro 370 375 380 Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val 385 390 395 400 His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser 405 410 415 Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile 420 425 430 Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val 435 440 445 Glu Pro Lys Ser Cys Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala 450 455 460 Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro 465 470 475 480 Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val 485 490 495 Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 500 505 510 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 515 520 525 Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln 530 535 540 Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala 545 550 555 560 Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro 565 570 575 Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr 580 585 590 Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser 595 600 605 Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr 610 615 620 Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val 625 630 635 640 Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe 645 650 655 Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys 660 665 670 Ser Leu Ser Leu Ser Pro Gly Gly Gly Gly Gly Ser Gly Gly Gly Gly 675 680 685 Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val Leu Thr 690 695 700 Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala Thr Leu 705 710 715 720 Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala Trp Tyr 725 730 735 Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val Gly Ser 740 745 750 Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly Ser Gly 755 760 765 Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp Phe Ala 770 775 780 Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe Gly Gln 785 790 795 800 Gly Thr Lys Val Glu Ile Lys 805 <210> 77 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker G4S <400> 77 Gly Gly Gly Gly Ser 1 5 <210> 78 <211> 10 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker (G4S)2 <400> 78 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 1 5 10 <210> 79 <211> 10 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker (SG4)2 <400> 79 Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly 1 5 10 <210> 80 <211> 17 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker particular <400> 80 Gly Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Ser Gly Gly Gly Gly 1 5 10 15 Ser <210> 81 <211> 15 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker (G4S)3 <400> 81 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 1 5 10 15 <210> 82 <211> 14 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker G4(SG4)2 <400> 82 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly 1 5 10 <210> 83 <211> 20 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker (G4S)4 <400> 83 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly 1 5 10 15 Gly Gly Gly Ser 20 <210> 84 <211> 19 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GGGGSGGGGSGGGSGGGGS <400> 84 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly 1 5 10 15 Gly Gly Ser <210> 85 <211> 10 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GSPGSSSSGS <400> 85 Gly Ser Pro Gly Ser Ser Ser Ser Gly Ser 1 5 10 <210> 86 <211> 8 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GSGSGSGS <400> 86 Gly Ser Gly Ser Gly Ser Gly Ser 1 5 <210> 87 <211> 8 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GSGSGNGS <400> 87 Gly Ser Gly Ser Gly Asn Gly Ser 1 5 <210> 88 <211> 8 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GGSGSGSG <400> 88 Gly Gly Ser Gly Ser Gly Ser Gly 1 5 <210> 89 <211> 6 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GGSGSG <400> 89 Gly Gly Ser Gly Ser Gly 1 5 <210> 90 <211> 4 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GGSG <400> 90 Gly Gly Ser Gly 1 <210> 91 <211> 8 <212> PRT <213> Artificial Sequence <220> <223> GGSGNGSG <400> 91 Gly Gly Ser Gly Asn Gly Ser Gly 1 5 <210> 92 <211> 8 <212> PRT <213> Artificial Sequence <220> <223> Peptide inker GGNGSGSG <400> 92 Gly Gly Asn Gly Ser Gly Ser Gly 1 5 <210> 93 <211> 6 <212> PRT <213> Artificial Sequence <220> <223> Peptide linker GGNGSG <400> 93 Gly Gly Asn Gly Ser Gly 1 5 <210> 94 <211> 98 <212> PRT <213> Homo sapiens <400> 94 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys 1 5 10 15 Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 20 25 30 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 35 40 45 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 50 55 60 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr 65 70 75 80 Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys 85 90 95 Lys Val <210> 95 <211> 107 <212> PRT <213> Homo sapiens <400> 95 Ala Pro Glu Leu Leu Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys 1 5 10 15 Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val 20 25 30 Trp Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 35 40 45 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 50 55 60 Glu Ser Thr Tyr Arg Trp Ser Val Leu Thr Val Leu His Gln Asp Trp 65 70 75 80 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Pro 85 90 95 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys 100 105 <210> 96 <211> 106 <212> PRT <213> Homo sapiens <400> 96 Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Ser Arg Asp 1 5 10 15 Glu Leu Thr Lys Asn Gln Val Ser Leu Thr Cys Leu Val Lys Gly Phe 20 25 30 Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu 35 40 45 Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe 50 55 60 Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly 65 70 75 80 Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr 85 90 95 Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly 100 105 <210> 97 <211> 760 <212> PRT <213> Homo sapiens <400> 97 Met Lys Thr Trp Val Lys Ile Val Phe Gly Val Ala Thr Ser Ala Val 1 5 10 15 Leu Ala Leu Leu Val Met Cys Ile Val Leu Arg Pro Ser Arg Val His 20 25 30 Asn Ser Glu Glu Asn Thr Met Arg Ala Leu Thr Leu Lys Asp Ile Leu 35 40 45 Asn Gly Thr Phe Ser Tyr Lys Thr Phe Phe Pro Asn Trp Ile Ser Gly 50 55 60 Gln Glu Tyr Leu His Gln Ser Ala Asp Asn Asn Ile Val Leu Tyr Asn 65 70 75 80 Ile Glu Thr Gly Gln Ser Tyr Thr Ile Leu Ser Asn Arg Thr Met Lys 85 90 95 Ser Val Asn Ala Ser Asn Tyr Gly Leu Ser Pro Asp Arg Gln Phe Val 100 105 110 Tyr Leu Glu Ser Asp Tyr Ser Lys Leu Trp Arg Tyr Ser Tyr Thr Ala 115 120 125 Thr Tyr Tyr Ile Tyr Asp Leu Ser Asn Gly Glu Phe Val Arg Gly Asn 130 135 140 Glu Leu Pro Arg Pro Ile Gln Tyr Leu Cys Trp Ser Pro Val Gly Ser 145 150 155 160 Lys Leu Ala Tyr Val Tyr Gln Asn Asn Ile Tyr Leu Lys Gln Arg Pro 165 170 175 Gly Asp Pro Pro Phe Gln Ile Thr Phe Asn Gly Arg Glu Asn Lys Ile 180 185 190 Phe Asn Gly Ile Pro Asp Trp Val Tyr Glu Glu Glu Met Leu Ala Thr 195 200 205 Lys Tyr Ala Leu Trp Trp Ser Pro Asn Gly Lys Phe Leu Ala Tyr Ala 210 215 220 Glu Phe Asn Asp Thr Asp Ile Pro Val Ile Ala Tyr Ser Tyr Tyr Gly 225 230 235 240 Asp Glu Gln Tyr Pro Arg Thr Ile Asn Ile Pro Tyr Pro Lys Ala Gly 245 250 255 Ala Lys Asn Pro Val Val Arg Ile Phe Ile Ile Asp Thr Thr Tyr Pro 260 265 270 Ala Tyr Val Gly Pro Gln Glu Val Pro Val Pro Ala Met Ile Ala Ser 275 280 285 Ser Asp Tyr Tyr Phe Ser Trp Leu Thr Trp Val Thr Asp Glu Arg Val 290 295 300 Cys Leu Gln Trp Leu Lys Arg Val Gln Asn Val Ser Val Leu Ser Ile 305 310 315 320 Cys Asp Phe Arg Glu Asp Trp Gln Thr Trp Asp Cys Pro Lys Thr Gln 325 330 335 Glu His Ile Glu Glu Ser Arg Thr Gly Trp Ala Gly Gly Phe Phe Val 340 345 350 Ser Thr Pro Val Phe Ser Tyr Asp Ala Ile Ser Tyr Tyr Lys Ile Phe 355 360 365 Ser Asp Lys Asp Gly Tyr Lys His Ile His Tyr Ile Lys Asp Thr Val 370 375 380 Glu Asn Ala Ile Gln Ile Thr Ser Gly Lys Trp Glu Ala Ile Asn Ile 385 390 395 400 Phe Arg Val Thr Gln Asp Ser Leu Phe Tyr Ser Ser Asn Glu Phe Glu 405 410 415 Glu Tyr Pro Gly Arg Arg Asn Ile Tyr Arg Ile Ser Ile Gly Ser Tyr 420 425 430 Pro Pro Ser Lys Lys Cys Val Thr Cys His Leu Arg Lys Glu Arg Cys 435 440 445 Gln Tyr Tyr Thr Ala Ser Phe Ser Asp Tyr Ala Lys Tyr Tyr Ala Leu 450 455 460 Val Cys Tyr Gly Pro Gly Ile Pro Ile Ser Thr Leu His Asp Gly Arg 465 470 475 480 Thr Asp Gln Glu Ile Lys Ile Leu Glu Glu Asn Lys Glu Leu Glu Asn 485 490 495 Ala Leu Lys Asn Ile Gln Leu Pro Lys Glu Glu Ile Lys Lys Leu Glu 500 505 510 Val Asp Glu Ile Thr Leu Trp Tyr Lys Met Ile Leu Pro Pro Gln Phe 515 520 525 Asp Arg Ser Lys Lys Tyr Pro Leu Leu Ile Gln Val Tyr Gly Gly Pro 530 535 540 Cys Ser Gln Ser Val Arg Ser Val Phe Ala Val Asn Trp Ile Ser Tyr 545 550 555 560 Leu Ala Ser Lys Glu Gly Met Val Ile Ala Leu Val Asp Gly Arg Gly 565 570 575 Thr Ala Phe Gln Gly Asp Lys Leu Leu Tyr Ala Val Tyr Arg Lys Leu 580 585 590 Gly Val Tyr Glu Val Glu Asp Gln Ile Thr Ala Val Arg Lys Phe Ile 595 600 605 Glu Met Gly Phe Ile Asp Glu Lys Arg Ile Ala Ile Trp Gly Trp Ser 610 615 620 Tyr Gly Gly Tyr Val Ser Ser Leu Ala Leu Ala Ser Gly Thr Gly Leu 625 630 635 640 Phe Lys Cys Gly Ile Ala Val Ala Pro Val Ser Ser Trp Glu Tyr Tyr 645 650 655 Ala Ser Val Tyr Thr Glu Arg Phe Met Gly Leu Pro Thr Lys Asp Asp 660 665 670 Asn Leu Glu His Tyr Lys Asn Ser Thr Val Met Ala Arg Ala Glu Tyr 675 680 685 Phe Arg Asn Val Asp Tyr Leu Leu Ile His Gly Thr Ala Asp Asp Asn 690 695 700 Val His Phe Gln Asn Ser Ala Gln Ile Ala Lys Ala Leu Val Asn Ala 705 710 715 720 Gln Val Asp Phe Gln Ala Met Trp Tyr Ser Asp Gln Asn His Gly Leu 725 730 735 Ser Gly Leu Ser Thr Asn His Leu Tyr Thr His Met Thr His Phe Leu 740 745 750 Lys Gln Cys Phe Ser Leu Ser Asp 755 760 <210> 98 <211> 761 <212> PRT <213> Mus musculus <400> 98 Met Lys Thr Trp Leu Lys Thr Val Phe Gly Val Thr Thr Leu Ala Ala 1 5 10 15 Leu Ala Leu Val Val Ile Cys Ile Val Leu Arg Pro Ser Arg Val Tyr 20 25 30 Lys Pro Glu Gly Asn Thr Lys Arg Ala Leu Thr Leu Lys Asp Ile Leu 35 40 45 Asn Gly Thr Phe Ser Tyr Lys Thr Tyr Phe Pro Asn Trp Ile Ser Glu 50 55 60 Gln Glu Tyr Leu His Gln Ser Glu Asp Asp Asn Ile Val Phe Tyr Asn 65 70 75 80 Ile Glu Thr Arg Glu Ser Tyr Ile Ile Leu Ser Asn Ser Thr Met Lys 85 90 95 Ser Val Asn Ala Thr Asp Tyr Gly Leu Ser Pro Asp Arg Gln Phe Val 100 105 110 Tyr Leu Glu Ser Asp Tyr Ser Lys Leu Trp Arg Tyr Ser Tyr Thr Ala 115 120 125 Thr Tyr Tyr Ile Tyr Asp Leu Gln Asn Gly Glu Phe Val Arg Gly Tyr 130 135 140 Glu Leu Pro Arg Pro Ile Gln Tyr Leu Cys Trp Ser Pro Val Gly Ser 145 150 155 160 Lys Leu Ala Tyr Val Tyr Gln Asn Asn Ile Tyr Leu Lys Gln Arg Pro 165 170 175 Gly Asp Pro Pro Phe Gln Ile Thr Tyr Thr Gly Arg Glu Asn Arg Ile 180 185 190 Phe Asn Gly Ile Pro Asp Trp Val Tyr Glu Glu Glu Met Leu Ala Thr 195 200 205 Lys Tyr Ala Leu Trp Trp Ser Pro Asp Gly Lys Phe Leu Ala Tyr Val 210 215 220 Glu Phe Asn Asp Ser Asp Ile Pro Ile Ile Ala Tyr Ser Tyr Tyr Gly 225 230 235 240 Asp Gly Gln Tyr Pro Arg Thr Ile Asn Ile Pro Tyr Pro Lys Ala Gly 245 250 255 Ala Lys Asn Pro Val Val Arg Val Phe Ile Val Asp Thr Thr Tyr Pro 260 265 270 His His Val Gly Pro Met Glu Val Pro Val Pro Glu Met Ile Ala Ser 275 280 285 Ser Asp Tyr Tyr Phe Ser Trp Leu Thr Trp Val Ser Ser Glu Arg Val 290 295 300 Cys Leu Gln Trp Leu Lys Arg Val Gln Asn Val Ser Val Leu Ser Ile 305 310 315 320 Cys Asp Phe Arg Glu Asp Trp His Ala Trp Glu Cys Pro Lys Asn Gln 325 330 335 Glu His Val Glu Glu Ser Arg Thr Gly Trp Ala Gly Gly Phe Phe Val 340 345 350 Ser Thr Pro Ala Phe Ser Gln Asp Ala Thr Ser Tyr Tyr Lys Ile Phe 355 360 365 Ser Asp Lys Asp Gly Tyr Lys His Ile His Tyr Ile Lys Asp Thr Val 370 375 380 Glu Asn Ala Ile Gln Ile Thr Ser Gly Lys Trp Glu Ala Ile Tyr Ile 385 390 395 400 Phe Arg Val Thr Gln Asp Ser Leu Phe Tyr Ser Ser Asn Glu Phe Glu 405 410 415 Gly Tyr Pro Gly Arg Arg Asn Ile Tyr Arg Ile Ser Ile Gly Asn Ser 420 425 430 Pro Pro Ser Lys Lys Cys Val Thr Cys His Leu Arg Lys Glu Arg Cys 435 440 445 Gln Tyr Tyr Thr Ala Ser Phe Ser Tyr Lys Ala Lys Tyr Tyr Ala Leu 450 455 460 Val Cys Tyr Gly Pro Gly Leu Pro Ile Ser Thr Leu His Asp Gly Arg 465 470 475 480 Thr Asp Gln Glu Ile Gln Val Leu Glu Glu Asn Lys Glu Leu Glu Asn 485 490 495 Ser Leu Arg Asn Ile Gln Leu Pro Lys Val Glu Ile Lys Lys Leu Lys 500 505 510 Asp Gly Gly Leu Thr Phe Trp Tyr Lys Met Ile Leu Pro Pro Gln Phe 515 520 525 Asp Arg Ser Lys Lys Tyr Pro Leu Leu Ile Gln Val Tyr Gly Gly Pro 530 535 540 Cys Ser Gln Ser Val Lys Ser Val Phe Ala Val Asn Trp Ile Thr Tyr 545 550 555 560 Leu Ala Ser Lys Glu Gly Ile Val Ile Ala Leu Val Asp Gly Arg Gly 565 570 575 Thr Ala Phe Gln Gly Asp Lys Phe Leu His Ala Val Tyr Arg Lys Leu 580 585 590 Gly Val Tyr Glu Val Glu Asp Gln Leu Thr Ala Val Arg Lys Phe Ile 595 600 605 Glu Met Gly Phe Ile Asp Glu Glu Arg Ile Ala Ile Trp Gly Trp Ser 610 615 620 Tyr Gly Gly Tyr Val Ser Ser Leu Ala Leu Ala Ser Gly Thr Gly Leu 625 630 635 640 Phe Lys Cys Gly Ile Ala Val Ala Pro Val Ser Ser Trp Glu Tyr Tyr 645 650 655 Ala Ser Ile Tyr Ser Glu Arg Phe Met Gly Leu Pro Thr Lys Asp Asp 660 665 670 Asn Leu Glu His Tyr Lys Asn Ser Thr Val Met Ala Arg Ala Glu Tyr 675 680 685 Phe Arg Asn Val Asp Tyr Leu Leu Ile His Gly Thr Ala Asp Asp Asn 690 695 700 Val His Phe Gln Asn Ser Ala Gln Ile Ala Lys Ala Leu Val Asn Ala 705 710 715 720 Gln Val Asp Phe Gln Ala Met Trp Tyr Ser Asp Gln Asn His Gly Ile 725 730 735 Ser Ser Gly Arg Ser Gln Asn His Leu Tyr Thr His Met Thr His Phe 740 745 750 Leu Lys Gln Cys Phe Ser Leu Ser Asp 755 760 <210> 99 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> CH1 connector <400> 99 Glu Pro Lys Ser Cys 1 5 <210> 100 <211> 10 <212> PRT <213> Artificial Sequence <220> <223> hinge with X being S or P <220> <221> X <222> (8)..(8) <223> X is S or P <400> 100 Asp Lys Thr His Thr Cys Pro Xaa Cys Pro 1 5 10 <210> 101 <211> 7 <212> PRT <213> Artificial Sequence <220> <223> hinge with X being S or P <220> <221> X <222> (5)..(5) <223> X is S or P <400> 101 His Thr Cys Pro Xaa Cys Pro 1 5 <210> 102 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> hinge with X being S or P <220> <221> X <222> (3)..(3) <223> X is S or P <400> 102 Cys Pro Xaa Cys Pro 1 5 <210> 103 <211> 330 <212> PRT <213> Homo sapiens <400> 103 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys 1 5 10 15 Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 20 25 30 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 35 40 45 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 50 55 60 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr 65 70 75 80 Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys 85 90 95 Lys Val Glu Pro Lys Ser Cys Asp Lys Thr His Thr Cys Pro Pro Cys 100 105 110 Pro Ala Pro Glu Leu Leu Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 115 120 125 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 130 135 140 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 145 150 155 160 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 165 170 175 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 180 185 190 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 195 200 205 Lys Ala Leu Pro Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 210 215 220 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Ser Arg Asp Glu 225 230 235 240 Leu Thr Lys Asn Gln Val Ser Leu Thr Cys Leu Val Lys Gly Phe Tyr 245 250 255 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 260 265 270 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 275 280 285 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 290 295 300 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 305 310 315 320 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys 325 330 <210> 104 <211> 330 <212> PRT <213> Homo sapiens <400> 104 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys 1 5 10 15 Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 20 25 30 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 35 40 45 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 50 55 60 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr 65 70 75 80 Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys 85 90 95 Lys Val Glu Pro Lys Ser Cys Asp Lys Thr His Thr Cys Pro Pro Cys 100 105 110 Pro Ala Pro Glu Leu Leu Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 115 120 125 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 130 135 140 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 145 150 155 160 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 165 170 175 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 180 185 190 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 195 200 205 Lys Ala Leu Pro Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 210 215 220 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Ser Arg Glu Glu 225 230 235 240 Met Thr Lys Asn Gln Val Ser Leu Thr Cys Leu Val Lys Gly Phe Tyr 245 250 255 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 260 265 270 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 275 280 285 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 290 295 300 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 305 310 315 320 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys 325 330 <210> 105 <211> 326 <212> PRT <213> Homo sapiens <400> 105 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Cys Ser Arg 1 5 10 15 Ser Thr Ser Glu Ser Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 20 25 30 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 35 40 45 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 50 55 60 Leu Ser Ser Val Val Thr Val Pro Ser Ser Asn Phe Gly Thr Gln Thr 65 70 75 80 Tyr Thr Cys Asn Val Asp His Lys Pro Ser Asn Thr Lys Val Asp Lys 85 90 95 Thr Val Glu Arg Lys Cys Cys Val Glu Cys Pro Pro Cys Pro Ala Pro 100 105 110 Pro Val Ala Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 115 120 125 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 130 135 140 Val Ser His Glu Asp Pro Glu Val Gln Phe Asn Trp Tyr Val Asp Gly 145 150 155 160 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Phe Asn 165 170 175 Ser Thr Phe Arg Val Val Ser Val Leu Thr Val Val His Gln Asp Trp 180 185 190 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Gly Leu Pro 195 200 205 Ala Pro Ile Glu Lys Thr Ile Ser Lys Thr Lys Gly Gln Pro Arg Glu 210 215 220 Pro Gln Val Tyr Thr Leu Pro Pro Ser Arg Glu Glu Met Thr Lys Asn 225 230 235 240 Gln Val Ser Leu Thr Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile 245 250 255 Ser Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 260 265 270 Thr Pro Pro Met Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys 275 280 285 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 290 295 300 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 305 310 315 320 Ser Leu Ser Pro Gly Lys 325 <210> 106 <211> 377 <212> PRT <213> Homo sapiens <400> 106 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Cys Ser Arg 1 5 10 15 Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 20 25 30 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 35 40 45 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 50 55 60 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr 65 70 75 80 Tyr Thr Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys 85 90 95 Arg Val Glu Leu Lys Thr Pro Leu Gly Asp Thr Thr His Thr Cys Pro 100 105 110 Arg Cys Pro Glu Pro Lys Ser Cys Asp Thr Pro Pro Pro Cys Pro Arg 115 120 125 Cys Pro Glu Pro Lys Ser Cys Asp Thr Pro Pro Pro Cys Pro Arg Cys 130 135 140 Pro Glu Pro Lys Ser Cys Asp Thr Pro Pro Pro Cys Pro Arg Cys Pro 145 150 155 160 Ala Pro Glu Leu Leu Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys 165 170 175 Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val 180 185 190 Val Val Asp Val Ser His Glu Asp Pro Glu Val Gln Phe Lys Trp Tyr 195 200 205 Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu 210 215 220 Gln Tyr Asn Ser Thr Phe Arg Val Val Ser Val Leu Thr Val Leu His 225 230 235 240 Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys 245 250 255 Ala Leu Pro Ala Pro Ile Glu Lys Thr Ile Ser Lys Thr Lys Gly Gln 260 265 270 Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Ser Arg Glu Glu Met 275 280 285 Thr Lys Asn Gln Val Ser Leu Thr Cys Leu Val Lys Gly Phe Tyr Pro 290 295 300 Ser Asp Ile Ala Val Glu Trp Glu Ser Ser Gly Gln Pro Glu Asn Asn 305 310 315 320 Tyr Asn Thr Thr Pro Pro Met Leu Asp Ser Asp Gly Ser Phe Phe Leu 325 330 335 Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Ile 340 345 350 Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn Arg Phe Thr Gln 355 360 365 Lys Ser Leu Ser Leu Ser Pro Gly Lys 370 375 <210> 107 <211> 327 <212> PRT <213> Homo sapiens <400> 107 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Cys Ser Arg 1 5 10 15 Ser Thr Ser Glu Ser Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 20 25 30 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 35 40 45 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 50 55 60 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Lys Thr 65 70 75 80 Tyr Thr Cys Asn Val Asp His Lys Pro Ser Asn Thr Lys Val Asp Lys 85 90 95 Arg Val Glu Ser Lys Tyr Gly Pro Pro Cys Pro Ser Cys Pro Ala Pro 100 105 110 Glu Phe Leu Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys 115 120 125 Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val 130 135 140 Asp Val Ser Gln Glu Asp Pro Glu Val Gln Phe Asn Trp Tyr Val Asp 145 150 155 160 Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Phe 165 170 175 Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp 180 185 190 Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Gly Leu 195 200 205 Pro Ser Ser Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg 210 215 220 Glu Pro Gln Val Tyr Thr Leu Pro Pro Ser Gln Glu Glu Met Thr Lys 225 230 235 240 Asn Gln Val Ser Leu Thr Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp 245 250 255 Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys 260 265 270 Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser 275 280 285 Arg Leu Thr Val Asp Lys Ser Arg Trp Gln Glu Gly Asn Val Phe Ser 290 295 300 Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser 305 310 315 320 Leu Ser Leu Ser Leu Gly Lys 325 <210> 108 <211> 277 <212> PRT <213> Homo sapiens <400> 108 Met Cys Val Gly Ala Arg Arg Leu Gly Arg Gly Pro Cys Ala Ala Leu 1 5 10 15 Leu Leu Leu Gly Leu Gly Leu Ser Thr Val Thr Gly Leu His Cys Val 20 25 30 Gly Asp Thr Tyr Pro Ser Asn Asp Arg Cys Cys His Glu Cys Arg Pro 35 40 45 Gly Asn Gly Met Val Ser Arg Cys Ser Arg Ser Gln Asn Thr Val Cys 50 55 60 Arg Pro Cys Gly Pro Gly Phe Tyr Asn Asp Val Val Ser Ser Lys Pro 65 70 75 80 Cys Lys Pro Cys Thr Trp Cys Asn Leu Arg Ser Gly Ser Glu Arg Lys 85 90 95 Gln Leu Cys Thr Ala Thr Gln Asp Thr Val Cys Arg Cys Arg Ala Gly 100 105 110 Thr Gln Pro Leu Asp Ser Tyr Lys Pro Gly Val Asp Cys Ala Pro Cys 115 120 125 Pro Pro Gly His Phe Ser Pro Gly Asp Asn Gln Ala Cys Lys Pro Trp 130 135 140 Thr Asn Cys Thr Leu Ala Gly Lys His Thr Leu Gln Pro Ala Ser Asn 145 150 155 160 Ser Ser Asp Ala Ile Cys Glu Asp Arg Asp Pro Pro Ala Thr Gln Pro 165 170 175 Gln Glu Thr Gln Gly Pro Pro Ala Arg Pro Ile Thr Val Gln Pro Thr 180 185 190 Glu Ala Trp Pro Arg Thr Ser Gln Gly Pro Ser Thr Arg Pro Val Glu 195 200 205 Val Pro Gly Gly Arg Ala Val Ala Ala Ile Leu Gly Leu Gly Leu Val 210 215 220 Leu Gly Leu Leu Gly Pro Leu Ala Ile Leu Leu Ala Leu Tyr Leu Leu 225 230 235 240 Arg Arg Asp Gln Arg Leu Pro Pro Asp Ala His Lys Pro Pro Gly Gly 245 250 255 Gly Ser Phe Arg Thr Pro Ile Gln Glu Glu Gln Ala Asp Ala His Ser 260 265 270 Thr Leu Ala Lys Ile 275 <210> 109 <211> 255 <212> PRT <213> Homo sapiens <400> 109 Met Gly Asn Ser Cys Tyr Asn Ile Val Ala Thr Leu Leu Leu Val Leu 1 5 10 15 Asn Phe Glu Arg Thr Arg Ser Leu Gln Asp Pro Cys Ser Asn Cys Pro 20 25 30 Ala Gly Thr Phe Cys Asp Asn Asn Arg Asn Gln Ile Cys Ser Pro Cys 35 40 45 Pro Pro Asn Ser Phe Ser Ser Ala Gly Gly Gln Arg Thr Cys Asp Ile 50 55 60 Cys Arg Gln Cys Lys Gly Val Phe Arg Thr Arg Lys Glu Cys Ser Ser 65 70 75 80 Thr Ser Asn Ala Glu Cys Asp Cys Thr Pro Gly Phe His Cys Leu Gly 85 90 95 Ala Gly Cys Ser Met Cys Glu Gln Asp Cys Lys Gln Gly Gln Glu Leu 100 105 110 Thr Lys Lys Gly Cys Lys Asp Cys Cys Phe Gly Thr Phe Asn Asp Gln 115 120 125 Lys Arg Gly Ile Cys Arg Pro Trp Thr Asn Cys Ser Leu Asp Gly Lys 130 135 140 Ser Val Leu Val Asn Gly Thr Lys Glu Arg Asp Val Val Cys Gly Pro 145 150 155 160 Ser Pro Ala Asp Leu Ser Pro Gly Ala Ser Ser Val Thr Pro Pro Ala 165 170 175 Pro Ala Arg Glu Pro Gly His Ser Pro Gln Ile Ile Ser Phe Phe Leu 180 185 190 Ala Leu Thr Ser Thr Ala Leu Leu Phe Leu Leu Phe Phe Leu Thr Leu 195 200 205 Arg Phe Ser Val Val Lys Arg Gly Arg Lys Lys Leu Leu Tyr Ile Phe 210 215 220 Lys Gln Pro Phe Met Arg Pro Val Gln Thr Thr Gln Glu Glu Asp Gly 225 230 235 240 Cys Ser Cys Arg Phe Pro Glu Glu Glu Glu Gly Gly Cys Glu Leu 245 250 255 <210> 110 <211> 260 <212> PRT <213> Homo sapiens <400> 110 Met Ala Arg Pro His Pro Trp Trp Leu Cys Val Leu Gly Thr Leu Val 1 5 10 15 Gly Leu Ser Ala Thr Pro Ala Pro Lys Ser Cys Pro Glu Arg His Tyr 20 25 30 Trp Ala Gln Gly Lys Leu Cys Cys Gln Met Cys Glu Pro Gly Thr Phe 35 40 45 Leu Val Lys Asp Cys Asp Gln His Arg Lys Ala Ala Gln Cys Asp Pro 50 55 60 Cys Ile Pro Gly Val Ser Phe Ser Pro Asp His His Thr Arg Pro His 65 70 75 80 Cys Glu Ser Cys Arg His Cys Asn Ser Gly Leu Leu Val Arg Asn Cys 85 90 95 Thr Ile Thr Ala Asn Ala Glu Cys Ala Cys Arg Asn Gly Trp Gln Cys 100 105 110 Arg Asp Lys Glu Cys Thr Glu Cys Asp Pro Leu Pro Asn Pro Ser Leu 115 120 125 Thr Ala Arg Ser Ser Gln Ala Leu Ser Pro His Pro Gln Pro Thr His 130 135 140 Leu Pro Tyr Val Ser Glu Met Leu Glu Ala Arg Thr Ala Gly His Met 145 150 155 160 Gln Thr Leu Ala Asp Phe Arg Gln Leu Pro Ala Arg Thr Leu Ser Thr 165 170 175 His Trp Pro Pro Gln Arg Ser Leu Cys Ser Ser Asp Phe Ile Arg Ile 180 185 190 Leu Val Ile Phe Ser Gly Met Phe Leu Val Phe Thr Leu Ala Gly Ala 195 200 205 Leu Phe Leu His Gln Arg Arg Lys Tyr Arg Ser Asn Lys Gly Glu Ser 210 215 220 Pro Val Glu Pro Ala Glu Pro Cys His Tyr Ser Cys Pro Arg Glu Glu 225 230 235 240 Glu Gly Ser Thr Ile Pro Ile Gln Glu Asp Tyr Arg Lys Pro Glu Pro 245 250 255 Ala Cys Ser Pro 260 <210> 111 <211> 283 <212> PRT <213> Homo sapiens <400> 111 Met Glu Pro Pro Gly Asp Trp Gly Pro Pro Pro Trp Arg Ser Thr Pro 1 5 10 15 Lys Thr Asp Val Leu Arg Leu Val Leu Tyr Leu Thr Phe Leu Gly Ala 20 25 30 Pro Cys Tyr Ala Pro Ala Leu Pro Ser Cys Lys Glu Asp Glu Tyr Pro 35 40 45 Val Gly Ser Glu Cys Cys Pro Lys Cys Ser Pro Gly Tyr Arg Val Lys 50 55 60 Glu Ala Cys Gly Glu Leu Thr Gly Thr Val Cys Glu Pro Cys Pro Pro 65 70 75 80 Gly Thr Tyr Ile Ala His Leu Asn Gly Leu Ser Lys Cys Leu Gln Cys 85 90 95 Gln Met Cys Asp Pro Ala Met Gly Leu Arg Ala Ser Arg Asn Cys Ser 100 105 110 Arg Thr Glu Asn Ala Val Cys Gly Cys Ser Pro Gly His Phe Cys Ile 115 120 125 Val Gln Asp Gly Asp His Cys Ala Ala Cys Arg Ala Tyr Ala Thr Ser 130 135 140 Ser Pro Gly Gln Arg Val Gln Lys Gly Gly Thr Glu Ser Gln Asp Thr 145 150 155 160 Leu Cys Gln Asn Cys Pro Pro Gly Thr Phe Ser Pro Asn Gly Thr Leu 165 170 175 Glu Glu Cys Gln His Gln Thr Lys Cys Ser Trp Leu Val Thr Lys Ala 180 185 190 Gly Ala Gly Thr Ser Ser Ser His Trp Val Trp Trp Phe Leu Ser Gly 195 200 205 Ser Leu Val Ile Val Ile Val Cys Ser Thr Val Gly Leu Ile Ile Cys 210 215 220 Val Lys Arg Arg Lys Pro Arg Gly Asp Val Val Lys Val Ile Val Ser 225 230 235 240 Val Gln Arg Lys Arg Gln Glu Ala Glu Gly Glu Ala Thr Val Ile Glu 245 250 255 Ala Leu Gln Ala Pro Pro Asp Val Thr Thr Val Ala Val Glu Glu Thr 260 265 270 Ile Pro Ser Phe Thr Gly Arg Ser Pro Asn His 275 280 <210> 112 <211> 595 <212> PRT <213> Homo sapiens <400> 112 Met Arg Val Leu Leu Ala Ala Leu Gly Leu Leu Phe Leu Gly Ala Leu 1 5 10 15 Arg Ala Phe Pro Gln Asp Arg Pro Phe Glu Asp Thr Cys His Gly Asn 20 25 30 Pro Ser His Tyr Tyr Asp Lys Ala Val Arg Arg Cys Cys Tyr Arg Cys 35 40 45 Pro Met Gly Leu Phe Pro Thr Gln Gln Cys Pro Gln Arg Pro Thr Asp 50 55 60 Cys Arg Lys Gln Cys Glu Pro Asp Tyr Tyr Leu Asp Glu Ala Asp Arg 65 70 75 80 Cys Thr Ala Cys Val Thr Cys Ser Arg Asp Asp Leu Val Glu Lys Thr 85 90 95 Pro Cys Ala Trp Asn Ser Ser Arg Val Cys Glu Cys Arg Pro Gly Met 100 105 110 Phe Cys Ser Thr Ser Ala Val Asn Ser Cys Ala Arg Cys Phe Phe His 115 120 125 Ser Val Cys Pro Ala Gly Met Ile Val Lys Phe Pro Gly Thr Ala Gln 130 135 140 Lys Asn Thr Val Cys Glu Pro Ala Ser Pro Gly Val Ser Pro Ala Cys 145 150 155 160 Ala Ser Pro Glu Asn Cys Lys Glu Pro Ser Ser Gly Thr Ile Pro Gln 165 170 175 Ala Lys Pro Thr Pro Val Ser Pro Ala Thr Ser Ser Ala Ser Thr Met 180 185 190 Pro Val Arg Gly Gly Thr Arg Leu Ala Gln Glu Ala Ala Ser Lys Leu 195 200 205 Thr Arg Ala Pro Asp Ser Pro Ser Ser Val Gly Arg Pro Ser Ser Asp 210 215 220 Pro Gly Leu Ser Pro Thr Gln Pro Cys Pro Glu Gly Ser Gly Asp Cys 225 230 235 240 Arg Lys Gln Cys Glu Pro Asp Tyr Tyr Leu Asp Glu Ala Gly Arg Cys 245 250 255 Thr Ala Cys Val Ser Cys Ser Arg Asp Asp Leu Val Glu Lys Thr Pro 260 265 270 Cys Ala Trp Asn Ser Ser Arg Thr Cys Glu Cys Arg Pro Gly Met Ile 275 280 285 Cys Ala Thr Ser Ala Thr Asn Ser Cys Ala Arg Cys Val Pro Tyr Pro 290 295 300 Ile Cys Ala Ala Glu Thr Val Thr Lys Pro Gln Asp Met Ala Glu Lys 305 310 315 320 Asp Thr Thr Phe Glu Ala Pro Pro Leu Gly Thr Gln Pro Asp Cys Asn 325 330 335 Pro Thr Pro Glu Asn Gly Glu Ala Pro Ala Ser Thr Ser Pro Thr Gln 340 345 350 Ser Leu Leu Val Asp Ser Gln Ala Ser Lys Thr Leu Pro Ile Pro Thr 355 360 365 Ser Ala Pro Val Ala Leu Ser Ser Thr Gly Lys Pro Val Leu Asp Ala 370 375 380 Gly Pro Val Leu Phe Trp Val Ile Leu Val Leu Val Val Val Val Gly 385 390 395 400 Ser Ser Ala Phe Leu Leu Cys His Arg Arg Ala Cys Arg Lys Arg Ile 405 410 415 Arg Gln Lys Leu His Leu Cys Tyr Pro Val Gln Thr Ser Gln Pro Lys 420 425 430 Leu Glu Leu Val Asp Ser Arg Pro Arg Arg Ser Ser Thr Gln Leu Arg 435 440 445 Ser Gly Ala Ser Val Thr Glu Pro Val Ala Glu Glu Arg Gly Leu Met 450 455 460 Ser Gln Pro Leu Met Glu Thr Cys His Ser Val Gly Ala Ala Tyr Leu 465 470 475 480 Glu Ser Leu Pro Leu Gln Asp Ala Ser Pro Ala Gly Gly Pro Ser Ser 485 490 495 Pro Arg Asp Leu Pro Glu Pro Arg Val Ser Thr Glu His Thr Asn Asn 500 505 510 Lys Ile Glu Lys Ile Tyr Ile Met Lys Ala Asp Thr Val Ile Val Gly 515 520 525 Thr Val Lys Ala Glu Leu Pro Glu Gly Arg Gly Leu Ala Gly Pro Ala 530 535 540 Glu Pro Glu Leu Glu Glu Glu Leu Glu Ala Asp His Thr Pro His Tyr 545 550 555 560 Pro Glu Gln Glu Thr Glu Pro Pro Leu Gly Ser Cys Ser Asp Val Met 565 570 575 Leu Ser Val Glu Glu Glu Gly Lys Glu Asp Pro Leu Pro Thr Ala Ala 580 585 590 Ser Gly Lys 595 <210> 113 <211> 241 <212> PRT <213> Homo sapiens <400> 113 Met Ala Gln His Gly Ala Met Gly Ala Phe Arg Ala Leu Cys Gly Leu 1 5 10 15 Ala Leu Leu Cys Ala Leu Ser Leu Gly Gln Arg Pro Thr Gly Gly Pro 20 25 30 Gly Cys Gly Pro Gly Arg Leu Leu Leu Gly Thr Gly Thr Asp Ala Arg 35 40 45 Cys Cys Arg Val His Thr Thr Arg Cys Cys Arg Asp Tyr Pro Gly Glu 50 55 60 Glu Cys Cys Ser Glu Trp Asp Cys Met Cys Val Gln Pro Glu Phe His 65 70 75 80 Cys Gly Asp Pro Cys Cys Thr Thr Cys Arg His His Pro Cys Pro Pro 85 90 95 Gly Gln Gly Val Gln Ser Gln Gly Lys Phe Ser Phe Gly Phe Gln Cys 100 105 110 Ile Asp Cys Ala Ser Gly Thr Phe Ser Gly Gly His Glu Gly His Cys 115 120 125 Lys Pro Trp Thr Asp Cys Thr Gln Phe Gly Phe Leu Thr Val Phe Pro 130 135 140 Gly Asn Lys Thr His Asn Ala Val Cys Val Pro Gly Ser Pro Pro Ala 145 150 155 160 Glu Pro Leu Gly Trp Leu Thr Val Val Leu Leu Ala Val Ala Ala Cys 165 170 175 Val Leu Leu Leu Thr Ser Ala Gln Leu Gly Leu His Ile Trp Gln Leu 180 185 190 Arg Ser Gln Cys Met Trp Pro Arg Glu Thr Gln Leu Leu Leu Glu Val 195 200 205 Pro Pro Ser Thr Glu Asp Ala Arg Ser Cys Gln Phe Pro Glu Glu Glu 210 215 220 Arg Gly Glu Arg Ser Ala Glu Glu Lys Gly Arg Leu Gly Asp Leu Trp 225 230 235 240 Val <210> 114 <211> 272 <212> PRT <213> Mus musculus <400> 114 Met Tyr Val Trp Val Gln Gln Pro Thr Ala Leu Leu Leu Leu Ala Leu 1 5 10 15 Thr Leu Gly Val Thr Ala Arg Arg Leu Asn Cys Val Lys His Thr Tyr 20 25 30 Pro Ser Gly His Lys Cys Cys Arg Glu Cys Gln Pro Gly His Gly Met 35 40 45 Val Ser Arg Cys Asp His Thr Arg Asp Thr Leu Cys His Pro Cys Glu 50 55 60 Thr Gly Phe Tyr Asn Glu Ala Val Asn Tyr Asp Thr Cys Lys Gln Cys 65 70 75 80 Thr Gln Cys Asn His Arg Ser Gly Ser Glu Leu Lys Gln Asn Cys Thr 85 90 95 Pro Thr Gln Asp Thr Val Cys Arg Cys Arg Pro Gly Thr Gln Pro Arg 100 105 110 Gln Asp Ser Gly Tyr Lys Leu Gly Val Asp Cys Val Pro Cys Pro Pro 115 120 125 Gly His Phe Ser Pro Gly Asn Asn Gln Ala Cys Lys Pro Trp Thr Asn 130 135 140 Cys Thr Leu Ser Gly Lys Gln Thr Arg His Pro Ala Ser Asp Ser Leu 145 150 155 160 Asp Ala Val Cys Glu Asp Arg Ser Leu Leu Ala Thr Leu Leu Trp Glu 165 170 175 Thr Gln Arg Pro Thr Phe Arg Pro Thr Thr Val Gln Ser Thr Thr Val 180 185 190 Trp Pro Arg Thr Ser Glu Leu Pro Ser Pro Pro Thr Leu Val Thr Pro 195 200 205 Glu Gly Pro Ala Phe Ala Val Leu Leu Gly Leu Gly Leu Gly Leu Leu 210 215 220 Ala Pro Leu Thr Val Leu Leu Ala Leu Tyr Leu Leu Arg Lys Ala Trp 225 230 235 240 Arg Leu Pro Asn Thr Pro Lys Pro Cys Trp Gly Asn Ser Phe Arg Thr 245 250 255 Pro Ile Gln Glu Glu His Thr Asp Ala His Phe Thr Leu Ala Lys Ile 260 265 270 <210> 115 <211> 277 <212> PRT <213> Homo sapiens <400> 115 Met Val Arg Leu Pro Leu Gln Cys Val Leu Trp Gly Cys Leu Leu Thr 1 5 10 15 Ala Val His Pro Glu Pro Pro Thr Ala Cys Arg Glu Lys Gln Tyr Leu 20 25 30 Ile Asn Ser Gln Cys Cys Ser Leu Cys Gln Pro Gly Gln Lys Leu Val 35 40 45 Ser Asp Cys Thr Glu Phe Thr Glu Thr Glu Cys Leu Pro Cys Gly Glu 50 55 60 Ser Glu Phe Leu Asp Thr Trp Asn Arg Glu Thr His Cys His Gln His 65 70 75 80 Lys Tyr Cys Asp Pro Asn Leu Gly Leu Arg Val Gln Gln Lys Gly Thr 85 90 95 Ser Glu Thr Asp Thr Ile Cys Thr Cys Glu Glu Gly Trp His Cys Thr 100 105 110 Ser Glu Ala Cys Glu Ser Cys Val Leu His Arg Ser Cys Ser Pro Gly 115 120 125 Phe Gly Val Lys Gln Ile Ala Thr Gly Val Ser Asp Thr Ile Cys Glu 130 135 140 Pro Cys Pro Val Gly Phe Phe Ser Asn Val Ser Ser Ala Phe Glu Lys 145 150 155 160 Cys His Pro Trp Thr Ser Cys Glu Thr Lys Asp Leu Val Val Gln Gln 165 170 175 Ala Gly Thr Asn Lys Thr Asp Val Val Cys Gly Pro Gln Asp Arg Leu 180 185 190 Arg Ala Leu Val Val Ile Pro Ile Ile Phe Gly Ile Leu Phe Ala Ile 195 200 205 Leu Leu Val Leu Val Phe Ile Lys Lys Val Ala Lys Lys Pro Thr Asn 210 215 220 Lys Ala Pro His Pro Lys Gln Glu Pro Gln Glu Ile Asn Phe Pro Asp 225 230 235 240 Asp Leu Pro Gly Ser Asn Thr Ala Ala Pro Val Gln Glu Thr Leu His 245 250 255 Gly Cys Gln Pro Val Thr Gln Glu Asp Gly Lys Glu Ser Arg Ile Ser 260 265 270 Val Gln Glu Arg Gln 275 <210> 116 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1122 <400> 116 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val 740 745 750 Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 117 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1122 <400> 117 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 118 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1942 <400> 118 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala 100 105 110 Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly 115 120 125 Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala 130 135 140 Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln 145 150 155 160 Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser 165 170 175 Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr 180 185 190 Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser 195 200 205 Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 210 215 220 Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly 225 230 235 240 Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met 245 250 255 Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His 260 265 270 Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val 275 280 285 His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr 290 295 300 Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly 305 310 315 320 Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile 325 330 335 Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val 340 345 350 Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser 355 360 365 Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu 370 375 380 Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro 385 390 395 400 Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val 405 410 415 Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met 420 425 430 His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser 435 440 445 Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln 450 455 460 Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys 465 470 475 480 Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser 485 490 495 Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile 500 505 510 Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg 515 520 525 Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu 530 535 540 Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu 545 550 555 560 Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr 565 570 575 Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro 580 585 590 Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val 595 600 605 Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala 610 615 620 Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly 625 630 635 640 Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly 645 650 655 Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys 660 665 670 Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val 740 745 750 Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 119 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1942 <400> 119 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala 100 105 110 Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly 115 120 125 Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala 130 135 140 Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln 145 150 155 160 Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser 165 170 175 Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr 180 185 190 Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser 195 200 205 Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 210 215 220 Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly 225 230 235 240 Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met 245 250 255 Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His 260 265 270 Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val 275 280 285 His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr 290 295 300 Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly 305 310 315 320 Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile 325 330 335 Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val 340 345 350 Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser 355 360 365 Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu 370 375 380 Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro 385 390 395 400 Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val 405 410 415 Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met 420 425 430 His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser 435 440 445 Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln 450 455 460 Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys 465 470 475 480 Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser 485 490 495 Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile 500 505 510 Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg 515 520 525 Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu 530 535 540 Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu 545 550 555 560 Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr 565 570 575 Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro 580 585 590 Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val 595 600 605 Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala 610 615 620 Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly 625 630 635 640 Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly 645 650 655 Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys 660 665 670 Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 120 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1887 <400> 120 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala 100 105 110 Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly 115 120 125 Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala 130 135 140 Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln 145 150 155 160 Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser 165 170 175 Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr 180 185 190 Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser 195 200 205 Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 210 215 220 Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly 225 230 235 240 Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met 245 250 255 Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His 260 265 270 Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val 275 280 285 His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr 290 295 300 Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly 305 310 315 320 Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile 325 330 335 Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val 340 345 350 Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn Gln Val Ser 355 360 365 Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu 370 375 380 Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro 385 390 395 400 Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val 405 410 415 Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met 420 425 430 His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser 435 440 445 Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln 450 455 460 Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys 465 470 475 480 Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser 485 490 495 Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile 500 505 510 Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg 515 520 525 Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu 530 535 540 Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu 545 550 555 560 Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr 565 570 575 Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro 580 585 590 Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val 595 600 605 Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala 610 615 620 Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly 625 630 635 640 Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly 645 650 655 Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys 660 665 670 Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 121 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1887 <400> 121 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val 740 745 750 Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 122 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1888 <400> 122 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 123 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1888 <400> 123 Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro 65 70 75 80 Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr 85 90 95 Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala 100 105 110 Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly 115 120 125 Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala 130 135 140 Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln 145 150 155 160 Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser 165 170 175 Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr 180 185 190 Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser 195 200 205 Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 210 215 220 Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly 225 230 235 240 Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met 245 250 255 Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His 260 265 270 Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val 275 280 285 His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr 290 295 300 Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly 305 310 315 320 Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile 325 330 335 Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val 340 345 350 Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser 355 360 365 Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu 370 375 380 Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro 385 390 395 400 Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val 405 410 415 Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met 420 425 430 His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser 435 440 445 Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln 450 455 460 Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys 465 470 475 480 Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser 485 490 495 Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile 500 505 510 Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg 515 520 525 Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu 530 535 540 Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu 545 550 555 560 Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr 565 570 575 Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro 580 585 590 Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val 595 600 605 Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala 610 615 620 Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly 625 630 635 640 Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly 645 650 655 Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys 660 665 670 Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val 740 745 750 Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 124 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2254 <400> 124 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Glu Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Glu Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Arg Lys 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 125 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2254 <400> 125 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Glu Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Glu Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Arg Lys 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile Val 690 695 700 Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala 705 710 715 720 Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu Ala 725 730 735 Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn Val 740 745 750 Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser Gly 755 760 765 Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu Asp 770 775 780 Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr Phe 785 790 795 800 Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 126 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2340 <400> 126 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Glu Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Glu Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Arg Lys 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr 625 630 635 640 Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys 645 650 655 His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro 660 665 670 Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val Gln 690 695 700 Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu Arg 705 710 715 720 Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met Ser 725 730 735 Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala Ile 740 745 750 Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly Arg 755 760 765 Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln Met 770 775 780 Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys Gly 785 790 795 800 Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr Val 805 810 815 Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 127 <211> 688 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2340 <400> 127 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 20 25 30 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 35 40 45 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 50 55 60 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 100 105 110 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 115 120 125 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 130 135 140 Cys Leu Val Glu Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 145 150 155 160 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 165 170 175 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 180 185 190 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 195 200 205 Asn Thr Lys Val Asp Glu Lys Val Glu Pro Lys Ser Cys Gly Gly Gly 210 215 220 Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys 225 230 235 240 Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro 245 250 255 Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys 260 265 270 Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp 275 280 285 Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu 290 295 300 Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu 305 310 315 320 His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn 325 330 335 Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly 340 345 350 Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu 355 360 365 Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr 370 375 380 Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn 385 390 395 400 Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe 405 410 415 Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn 420 425 430 Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr 435 440 445 Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly 450 455 460 Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser 465 470 475 480 Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser 485 490 495 Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro 500 505 510 Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser 515 520 525 Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser 530 535 540 Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser 545 550 555 560 Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg 565 570 575 Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Arg Lys 580 585 590 Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr 595 600 605 Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser 610 615 620 Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Val Thr Glu Gln 625 630 635 640 Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser 645 650 655 Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His 660 665 670 Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 675 680 685 <210> 128 <211> 213 <212> PRT <213> Artificial Sequence <220> <223> Light Chain P1AE2340 <400> 128 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro 85 90 95 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser 100 105 110 Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr 115 120 125 Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro 130 135 140 Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val 145 150 155 160 His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser 165 170 175 Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile 180 185 190 Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val 195 200 205 Glu Pro Lys Ser Cys 210 <210> 129 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2735 <400> 129 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu 100 105 110 Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe 115 120 125 Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys 130 135 140 Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val 145 150 155 160 Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln 165 170 175 Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser 180 185 190 Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His 195 200 205 Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 210 215 220 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly 225 230 235 240 Gly Gly Ser Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys 245 250 255 Pro Gly Ser Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe 260 265 270 Ser Ser Tyr Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu 275 280 285 Glu Trp Met Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala 290 295 300 Gln Lys Phe Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser 305 310 315 320 Thr Ala Tyr Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val 325 330 335 Tyr Tyr Cys Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly 340 345 350 Gln Gly Thr Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser 355 360 365 Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala 370 375 380 Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val 385 390 395 400 Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala 405 410 415 Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val 420 425 430 Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His 435 440 445 Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys 450 455 460 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys 465 470 475 480 Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu 485 490 495 Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu 500 505 510 Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys 515 520 525 Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys 530 535 540 Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu 545 550 555 560 Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys 565 570 575 Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys 580 585 590 Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys 595 600 605 Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys 610 615 620 Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln 625 630 635 640 Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly 645 650 655 Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln 660 665 670 Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn 675 680 685 His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly 690 695 700 Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser 705 710 715 720 Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala 725 730 735 Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly 740 745 750 Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly 755 760 765 Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu 770 775 780 Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln 785 790 795 800 Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu 805 810 815 Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser 820 825 830 Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn 835 840 845 Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala 850 855 860 Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys 865 870 875 880 Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp 885 890 895 Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu 900 905 910 Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 130 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2735 <400> 130 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro 85 90 95 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser 100 105 110 Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr 115 120 125 Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro 130 135 140 Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val 145 150 155 160 His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser 165 170 175 Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile 180 185 190 Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val 195 200 205 Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly 210 215 220 Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln Leu Val Gln Ser Gly 225 230 235 240 Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys Val Ser Cys Lys Ala 245 250 255 Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser Trp Val Arg Gln Ala 260 265 270 Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile Ile Pro Ile Phe Gly 275 280 285 Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg Val Thr Ile Thr Ala 290 295 300 Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu Ser Ser Leu Arg Ser 305 310 315 320 Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu Tyr Tyr Arg Gly Pro 325 330 335 Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr Val Ser Ser Ala Ser 340 345 350 Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr 355 360 365 Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro 370 375 380 Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val 385 390 395 400 His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser 405 410 415 Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile 420 425 430 Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val 435 440 445 Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp 450 455 460 Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly 465 470 475 480 Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile 485 490 495 Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp Val Ser His Glu 500 505 510 Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His 515 520 525 Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg 530 535 540 Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys 545 550 555 560 Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu 565 570 575 Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys 580 585 590 Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu 595 600 605 Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp 610 615 620 Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val 625 630 635 640 Leu Asp Ser Asp Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp 645 650 655 Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His 660 665 670 Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro 675 680 685 Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met 690 695 700 Thr Gln Ser Pro Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr 705 710 715 720 Ile Thr Cys Arg Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr 725 730 735 Gln Gln Lys Pro Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser 740 745 750 Ser Leu Glu Ser Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly 755 760 765 Thr Glu Phe Thr Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala 770 775 780 Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln 785 790 795 800 Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe 805 810 815 Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val 820 825 830 Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp 835 840 845 Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr 850 855 860 Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr 865 870 875 880 Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val 885 890 895 Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly 900 905 910 Glu Cys <210> 131 <211> 925 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2743 <400> 131 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu 100 105 110 Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe 115 120 125 Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys 130 135 140 Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val 145 150 155 160 Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln 165 170 175 Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser 180 185 190 Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His 195 200 205 Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 210 215 220 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly 225 230 235 240 Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala 245 250 255 Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile 260 265 270 Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys 275 280 285 Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg 290 295 300 Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser 305 310 315 320 Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser 325 330 335 Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr 340 345 350 Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu 355 360 365 Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro 370 375 380 Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly 385 390 395 400 Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr 405 410 415 Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His 420 425 430 Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val 435 440 445 Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly 450 455 460 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 465 470 475 480 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 485 490 495 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 500 505 510 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 515 520 525 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 530 535 540 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 545 550 555 560 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 565 570 575 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 580 585 590 Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn 595 600 605 Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile 610 615 620 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 625 630 635 640 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys 645 650 655 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 660 665 670 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 675 680 685 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 690 695 700 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser 705 710 715 720 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr 725 730 735 Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met 740 745 750 Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe 755 760 765 Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr 770 775 780 Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys 785 790 795 800 Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr 805 810 815 Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro 820 825 830 Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly 835 840 845 Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn 850 855 860 Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln 865 870 875 880 Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser 885 890 895 Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser 900 905 910 Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys 915 920 925 <210> 132 <211> 914 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2743 <400> 132 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro 85 90 95 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser 100 105 110 Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr 115 120 125 Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro 130 135 140 Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val 145 150 155 160 His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser 165 170 175 Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile 180 185 190 Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val 195 200 205 Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly 210 215 220 Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro 225 230 235 240 Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg 245 250 255 Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro 260 265 270 Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser 275 280 285 Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr 290 295 300 Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys 305 310 315 320 Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val 325 330 335 Glu Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 340 345 350 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 355 360 365 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 370 375 380 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 385 390 395 400 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 405 410 415 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 420 425 430 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly 435 440 445 Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro 450 455 460 Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro 465 470 475 480 Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr 485 490 495 Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn 500 505 510 Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg 515 520 525 Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val 530 535 540 Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser 545 550 555 560 Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys 565 570 575 Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp 580 585 590 Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe 595 600 605 Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu 610 615 620 Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe 625 630 635 640 Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly 645 650 655 Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr 660 665 670 Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val 690 695 700 Lys Lys Pro Gly Ser Ser Val Lys Val Ser Cys Lys Ala Ser Gly Gly 705 710 715 720 Thr Phe Ser Ser Tyr Ala Ile Ser Trp Val Arg Gln Ala Pro Gly Gln 725 730 735 Gly Leu Glu Trp Met Gly Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn 740 745 750 Tyr Ala Gln Lys Phe Gln Gly Arg Val Thr Ile Thr Ala Asp Lys Ser 755 760 765 Thr Ser Thr Ala Tyr Met Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr 770 775 780 Ala Val Tyr Tyr Cys Ala Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr 785 790 795 800 Trp Gly Gln Gly Thr Thr Val Thr Val Ser Ser Ala Ser Thr Lys Gly 805 810 815 Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly 820 825 830 Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val 835 840 845 Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe 850 855 860 Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val 865 870 875 880 Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val 885 890 895 Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys 900 905 910 Ser Cys <210> 133 <211> 919 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2762 <400> 133 Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser 20 25 30 Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu 35 40 45 Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser 50 55 60 Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu 65 70 75 80 Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro 85 90 95 Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Arg Thr Val Ala 100 105 110 Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser 115 120 125 Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu 130 135 140 Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser 145 150 155 160 Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu 165 170 175 Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val 180 185 190 Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys 195 200 205 Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser Gly Gly Gly Gly 210 215 220 Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln Val Gln Leu Val Gln 225 230 235 240 Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser Val Lys Val Ser Cys 245 250 255 Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala Ile Ser Trp Val Arg 260 265 270 Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly Gly Ile Ile Pro Ile 275 280 285 Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln Gly Arg Val Thr Ile 290 295 300 Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met Glu Leu Ser Ser Leu 305 310 315 320 Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala Arg Glu Tyr Tyr Arg 325 330 335 Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr Val Thr Val Ser Ser 340 345 350 Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 355 360 365 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 370 375 380 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 385 390 395 400 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 405 410 415 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 420 425 430 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 435 440 445 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Asp Gly Gly Gly Gly 450 455 460 Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro 465 470 475 480 Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys 485 490 495 Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val 500 505 510 Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr 515 520 525 Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu 530 535 540 Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His 545 550 555 560 Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys 565 570 575 Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln 580 585 590 Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu 595 600 605 Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro 610 615 620 Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn 625 630 635 640 Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu 645 650 655 Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val 660 665 670 Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln 675 680 685 Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly 690 695 700 Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro Ser Thr Leu Ser Ala 705 710 715 720 Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Ile 725 730 735 Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro Gly Lys Ala Pro Lys 740 745 750 Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser Gly Val Pro Ser Arg 755 760 765 Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr Leu Thr Ile Ser Ser 770 775 780 Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys Gln Gln Tyr Ser Ser 785 790 795 800 Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser 805 810 815 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys 820 825 830 Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 835 840 845 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 850 855 860 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 865 870 875 880 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr 885 890 895 Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys 900 905 910 Lys Val Glu Pro Lys Ser Cys 915 <210> 134 <211> 924 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2762 <400> 134 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr 20 25 30 Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu 100 105 110 Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu 115 120 125 Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys 130 135 140 Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser 145 150 155 160 Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser 165 170 175 Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser 180 185 190 Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn 195 200 205 Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly 210 215 220 Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Gln 225 230 235 240 Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ser Ser 245 250 255 Val Lys Val Ser Cys Lys Ala Ser Gly Gly Thr Phe Ser Ser Tyr Ala 260 265 270 Ile Ser Trp Val Arg Gln Ala Pro Gly Gln Gly Leu Glu Trp Met Gly 275 280 285 Gly Ile Ile Pro Ile Phe Gly Thr Ala Asn Tyr Ala Gln Lys Phe Gln 290 295 300 Gly Arg Val Thr Ile Thr Ala Asp Lys Ser Thr Ser Thr Ala Tyr Met 305 310 315 320 Glu Leu Ser Ser Leu Arg Ser Glu Asp Thr Ala Val Tyr Tyr Cys Ala 325 330 335 Arg Glu Tyr Tyr Arg Gly Pro Tyr Asp Tyr Trp Gly Gln Gly Thr Thr 340 345 350 Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe 355 360 365 Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys 370 375 380 Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val 385 390 395 400 Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln 405 410 415 Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser 420 425 430 Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His 435 440 445 Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 450 455 460 Asp Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr 465 470 475 480 Cys Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe 485 490 495 Leu Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro 500 505 510 Glu Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu Val 515 520 525 Lys Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr 530 535 540 Lys Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val 545 550 555 560 Leu Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys 565 570 575 Lys Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser 580 585 590 Lys Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro 595 600 605 Ser Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val 610 615 620 Lys Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly 625 630 635 640 Gln Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp 645 650 655 Gly Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp 660 665 670 Gln Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His 675 680 685 Asn His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly 690 695 700 Gly Gly Ser Gly Gly Gly Gly Ser Asp Ile Gln Met Thr Gln Ser Pro 705 710 715 720 Ser Thr Leu Ser Ala Ser Val Gly Asp Arg Val Thr Ile Thr Cys Arg 725 730 735 Ala Ser Gln Ser Ile Ser Ser Trp Leu Ala Trp Tyr Gln Gln Lys Pro 740 745 750 Gly Lys Ala Pro Lys Leu Leu Ile Tyr Asp Ala Ser Ser Leu Glu Ser 755 760 765 Gly Val Pro Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Glu Phe Thr 770 775 780 Leu Thr Ile Ser Ser Leu Gln Pro Asp Asp Phe Ala Thr Tyr Tyr Cys 785 790 795 800 Gln Gln Tyr Ser Ser Gln Pro Tyr Thr Phe Gly Gln Gly Thr Lys Val 805 810 815 Glu Ile Lys Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu 820 825 830 Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys 835 840 845 Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser 850 855 860 Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser 865 870 875 880 Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser 885 890 895 Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn 900 905 910 Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys 915 920 <210> 135 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) CDR-H1 <400> 135 Gly Tyr Tyr Trp Ser 1 5 <210> 136 <211> 16 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) CDR-H2 <400> 136 Glu Ile Asn His Gly Gly Tyr Val Thr Tyr Asn Pro Ser Leu Glu Ser 1 5 10 15 <210> 137 <211> 13 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) CDR-H3 <400> 137 Asp Tyr Gly Pro Gly Asn Tyr Asp Trp Tyr Phe Asp Leu 1 5 10 <210> 138 <211> 11 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) CDR-L1 <400> 138 Arg Ala Ser Gln Ser Val Ser Ser Tyr Leu Ala 1 5 10 <210> 139 <211> 7 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) CDR-L2 <400> 139 Asp Ala Ser Asn Arg Ala Thr 1 5 <210> 140 <211> 11 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) CDR-L3 <400> 140 Gln Gln Arg Ser Asn Trp Pro Pro Ala Leu Thr 1 5 10 <210> 141 <211> 121 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) VH <400> 141 Gln Val Gln Leu Gln Gln Trp Gly Ala Gly Leu Leu Lys Pro Ser Glu 1 5 10 15 Thr Leu Ser Leu Thr Cys Ala Val Tyr Gly Gly Ser Phe Ser Gly Tyr 20 25 30 Tyr Trp Ser Trp Ile Arg Gln Ser Pro Glu Lys Gly Leu Glu Trp Ile 35 40 45 Gly Glu Ile Asn His Gly Gly Tyr Val Thr Tyr Asn Pro Ser Leu Glu 50 55 60 Ser Arg Val Thr Ile Ser Val Asp Thr Ser Lys Asn Gln Phe Ser Leu 65 70 75 80 Lys Leu Ser Ser Val Thr Ala Ala Asp Thr Ala Val Tyr Tyr Cys Ala 85 90 95 Arg Asp Tyr Gly Pro Gly Asn Tyr Asp Trp Tyr Phe Asp Leu Trp Gly 100 105 110 Arg Gly Thr Leu Val Thr Val Ser Ser 115 120 <210> 142 <211> 109 <212> PRT <213> Artificial Sequence <220> <223> 4-1BB (20H4.9) VL <400> 142 Glu Ile Val Leu Thr Gln Ser Pro Ala Thr Leu Ser Leu Ser Pro Gly 1 5 10 15 Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Ser Ser Tyr 20 25 30 Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile 35 40 45 Tyr Asp Ala Ser Asn Arg Ala Thr Gly Ile Pro Ala Arg Phe Ser Gly 50 55 60 Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Ser Leu Glu Pro 65 70 75 80 Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Arg Ser Asn Trp Pro Pro 85 90 95 Ala Leu Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 <210> 143 <211> 930 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1899 <400> 143 Gln Val Gln Leu Gln Gln Trp Gly Ala Gly Leu Leu Lys Pro Ser Glu 1 5 10 15 Thr Leu Ser Leu Thr Cys Ala Val Tyr Gly Gly Ser Phe Ser Gly Tyr 20 25 30 Tyr Trp Ser Trp Ile Arg Gln Ser Pro Glu Lys Gly Leu Glu Trp Ile 35 40 45 Gly Glu Ile Asn His Gly Gly Tyr Val Thr Tyr Asn Pro Ser Leu Glu 50 55 60 Ser Arg Val Thr Ile Ser Val Asp Thr Ser Lys Asn Gln Phe Ser Leu 65 70 75 80 Lys Leu Ser Ser Val Thr Ala Ala Asp Thr Ala Val Tyr Tyr Cys Ala 85 90 95 Arg Asp Tyr Gly Pro Gly Asn Tyr Asp Trp Tyr Phe Asp Leu Trp Gly 100 105 110 Arg Gly Thr Leu Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser 115 120 125 Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala 130 135 140 Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val 145 150 155 160 Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala 165 170 175 Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val 180 185 190 Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His 195 200 205 Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys 210 215 220 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys 225 230 235 240 Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu 245 250 255 Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu 260 265 270 Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys 275 280 285 Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys 290 295 300 Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu 305 310 315 320 Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys 325 330 335 Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys 340 345 350 Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys 355 360 365 Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys 370 375 380 Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln 385 390 395 400 Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly 405 410 415 Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln 420 425 430 Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn 435 440 445 His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly 450 455 460 Gly Ser Gly Gly Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Ala 465 470 475 480 Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala 485 490 495 Ser Gln Ser Val Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly 500 505 510 Gln Ala Pro Arg Leu Leu Ile Tyr Asp Ala Ser Asn Arg Ala Thr Gly 515 520 525 Ile Pro Ala Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu 530 535 540 Thr Ile Ser Ser Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln 545 550 555 560 Gln Arg Ser Asn Trp Pro Pro Ala Leu Thr Phe Gly Gly Gly Thr Lys 565 570 575 Val Glu Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro 580 585 590 Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu 595 600 605 Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp 610 615 620 Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp 625 630 635 640 Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys 645 650 655 Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln 660 665 670 Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly 690 695 700 Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro 705 710 715 720 Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser 725 730 735 Ser Tyr Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu 740 745 750 Trp Val Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp 755 760 765 Ser Val Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr 770 775 780 Leu Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 785 790 795 800 Tyr Cys Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly 805 810 815 Thr Leu Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe 820 825 830 Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val 835 840 845 Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp 850 855 860 Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr 865 870 875 880 Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr 885 890 895 Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val 900 905 910 Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly 915 920 925 Glu Cys 930 <210> 144 <211> 919 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1899 <400> 144 Gln Val Gln Leu Gln Gln Trp Gly Ala Gly Leu Leu Lys Pro Ser Glu 1 5 10 15 Thr Leu Ser Leu Thr Cys Ala Val Tyr Gly Gly Ser Phe Ser Gly Tyr 20 25 30 Tyr Trp Ser Trp Ile Arg Gln Ser Pro Glu Lys Gly Leu Glu Trp Ile 35 40 45 Gly Glu Ile Asn His Gly Gly Tyr Val Thr Tyr Asn Pro Ser Leu Glu 50 55 60 Ser Arg Val Thr Ile Ser Val Asp Thr Ser Lys Asn Gln Phe Ser Leu 65 70 75 80 Lys Leu Ser Ser Val Thr Ala Ala Asp Thr Ala Val Tyr Tyr Cys Ala 85 90 95 Arg Asp Tyr Gly Pro Gly Asn Tyr Asp Trp Tyr Phe Asp Leu Trp Gly 100 105 110 Arg Gly Thr Leu Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser 115 120 125 Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala 130 135 140 Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val 145 150 155 160 Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala 165 170 175 Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val 180 185 190 Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His 195 200 205 Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys 210 215 220 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys 225 230 235 240 Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu 245 250 255 Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu 260 265 270 Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys 275 280 285 Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys 290 295 300 Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu 305 310 315 320 Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys 325 330 335 Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys 340 345 350 Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser 355 360 365 Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys 370 375 380 Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln 385 390 395 400 Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly 405 410 415 Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln 420 425 430 Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn 435 440 445 His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly 450 455 460 Gly Ser Gly Gly Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Ala 465 470 475 480 Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala 485 490 495 Ser Gln Ser Val Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly 500 505 510 Gln Ala Pro Arg Leu Leu Ile Tyr Asp Ala Ser Asn Arg Ala Thr Gly 515 520 525 Ile Pro Ala Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu 530 535 540 Thr Ile Ser Ser Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln 545 550 555 560 Gln Arg Ser Asn Trp Pro Pro Ala Leu Thr Phe Gly Gly Gly Thr Lys 565 570 575 Val Glu Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro 580 585 590 Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu 595 600 605 Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp 610 615 620 Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp 625 630 635 640 Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys 645 650 655 Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln 660 665 670 Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly 690 695 700 Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser 705 710 715 720 Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr 725 730 735 Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg 740 745 750 Leu Leu Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg 755 760 765 Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg 770 775 780 Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met 785 790 795 800 Leu Pro Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser 805 810 815 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys 820 825 830 Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 835 840 845 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 850 855 860 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 865 870 875 880 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr 885 890 895 Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys 900 905 910 Lys Val Glu Pro Lys Ser Cys 915 <210> 145 <211> 930 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2051 <400> 145 Gln Val Gln Leu Gln Gln Trp Gly Ala Gly Leu Leu Lys Pro Ser Glu 1 5 10 15 Thr Leu Ser Leu Thr Cys Ala Val Tyr Gly Gly Ser Phe Ser Gly Tyr 20 25 30 Tyr Trp Ser Trp Ile Arg Gln Ser Pro Glu Lys Gly Leu Glu Trp Ile 35 40 45 Gly Glu Ile Asn His Gly Gly Tyr Val Thr Tyr Asn Pro Ser Leu Glu 50 55 60 Ser Arg Val Thr Ile Ser Val Asp Thr Ser Lys Asn Gln Phe Ser Leu 65 70 75 80 Lys Leu Ser Ser Val Thr Ala Ala Asp Thr Ala Val Tyr Tyr Cys Ala 85 90 95 Arg Asp Tyr Gly Pro Gly Asn Tyr Asp Trp Tyr Phe Asp Leu Trp Gly 100 105 110 Arg Gly Thr Leu Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser 115 120 125 Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala 130 135 140 Ala Leu Gly Cys Leu Val Glu Asp Tyr Phe Pro Glu Pro Val Thr Val 145 150 155 160 Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala 165 170 175 Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val 180 185 190 Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His 195 200 205 Lys Pro Ser Asn Thr Lys Val Asp Glu Lys Val Glu Pro Lys Ser Cys 210 215 220 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys 225 230 235 240 Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu 245 250 255 Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu 260 265 270 Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys 275 280 285 Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys 290 295 300 Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu 305 310 315 320 Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys 325 330 335 Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys 340 345 350 Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys 355 360 365 Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys 370 375 380 Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln 385 390 395 400 Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly 405 410 415 Ser Phe Phe Leu Tyr Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln 420 425 430 Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn 435 440 445 His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly 450 455 460 Gly Ser Gly Gly Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Ala 465 470 475 480 Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala 485 490 495 Ser Gln Ser Val Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly 500 505 510 Gln Ala Pro Arg Leu Leu Ile Tyr Asp Ala Ser Asn Arg Ala Thr Gly 515 520 525 Ile Pro Ala Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu 530 535 540 Thr Ile Ser Ser Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln 545 550 555 560 Gln Arg Ser Asn Trp Pro Pro Ala Leu Thr Phe Gly Gly Gly Thr Lys 565 570 575 Val Glu Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro 580 585 590 Pro Ser Asp Arg Lys Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu 595 600 605 Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp 610 615 620 Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp 625 630 635 640 Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys 645 650 655 Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln 660 665 670 Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly 690 695 700 Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro 705 710 715 720 Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser 725 730 735 Ser Tyr Ala Met Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu 740 745 750 Trp Val Ser Ala Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp 755 760 765 Ser Val Lys Gly Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr 770 775 780 Leu Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 785 790 795 800 Tyr Cys Ala Lys Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly 805 810 815 Thr Leu Val Thr Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe 820 825 830 Ile Phe Pro Pro Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val 835 840 845 Val Cys Leu Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp 850 855 860 Lys Val Asp Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr 865 870 875 880 Glu Gln Asp Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr 885 890 895 Leu Ser Lys Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val 900 905 910 Thr His Gln Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly 915 920 925 Glu Cys 930 <210> 146 <211> 919 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2051 <400> 146 Gln Val Gln Leu Gln Gln Trp Gly Ala Gly Leu Leu Lys Pro Ser Glu 1 5 10 15 Thr Leu Ser Leu Thr Cys Ala Val Tyr Gly Gly Ser Phe Ser Gly Tyr 20 25 30 Tyr Trp Ser Trp Ile Arg Gln Ser Pro Glu Lys Gly Leu Glu Trp Ile 35 40 45 Gly Glu Ile Asn His Gly Gly Tyr Val Thr Tyr Asn Pro Ser Leu Glu 50 55 60 Ser Arg Val Thr Ile Ser Val Asp Thr Ser Lys Asn Gln Phe Ser Leu 65 70 75 80 Lys Leu Ser Ser Val Thr Ala Ala Asp Thr Ala Val Tyr Tyr Cys Ala 85 90 95 Arg Asp Tyr Gly Pro Gly Asn Tyr Asp Trp Tyr Phe Asp Leu Trp Gly 100 105 110 Arg Gly Thr Leu Val Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser 115 120 125 Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala 130 135 140 Ala Leu Gly Cys Leu Val Glu Asp Tyr Phe Pro Glu Pro Val Thr Val 145 150 155 160 Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala 165 170 175 Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val 180 185 190 Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His 195 200 205 Lys Pro Ser Asn Thr Lys Val Asp Glu Lys Val Glu Pro Lys Ser Cys 210 215 220 Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys 225 230 235 240 Pro Pro Cys Pro Ala Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu 245 250 255 Phe Pro Pro Lys Pro Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu 260 265 270 Val Thr Cys Val Val Val Asp Val Ser His Glu Asp Pro Glu Val Lys 275 280 285 Phe Asn Trp Tyr Val Asp Gly Val Glu Val His Asn Ala Lys Thr Lys 290 295 300 Pro Arg Glu Glu Gln Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu 305 310 315 320 Thr Val Leu His Gln Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys 325 330 335 Val Ser Asn Lys Ala Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys 340 345 350 Ala Lys Gly Gln Pro Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser 355 360 365 Arg Asp Glu Leu Thr Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys 370 375 380 Gly Phe Tyr Pro Ser Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln 385 390 395 400 Pro Glu Asn Asn Tyr Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly 405 410 415 Ser Phe Phe Leu Val Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln 420 425 430 Gln Gly Asn Val Phe Ser Cys Ser Val Met His Glu Ala Leu His Asn 435 440 445 His Tyr Thr Gln Lys Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly 450 455 460 Gly Ser Gly Gly Gly Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Ala 465 470 475 480 Thr Leu Ser Leu Ser Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala 485 490 495 Ser Gln Ser Val Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly 500 505 510 Gln Ala Pro Arg Leu Leu Ile Tyr Asp Ala Ser Asn Arg Ala Thr Gly 515 520 525 Ile Pro Ala Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu 530 535 540 Thr Ile Ser Ser Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln 545 550 555 560 Gln Arg Ser Asn Trp Pro Pro Ala Leu Thr Phe Gly Gly Gly Thr Lys 565 570 575 Val Glu Ile Lys Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro 580 585 590 Pro Ser Asp Arg Lys Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu 595 600 605 Leu Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp 610 615 620 Asn Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp 625 630 635 640 Ser Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys 645 650 655 Ala Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln 660 665 670 Gly Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly 675 680 685 Gly Gly Gly Ser Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly 690 695 700 Gly Ser Glu Ile Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser 705 710 715 720 Pro Gly Glu Arg Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr 725 730 735 Ser Ser Tyr Leu Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg 740 745 750 Leu Leu Ile Asn Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg 755 760 765 Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg 770 775 780 Leu Glu Pro Glu Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met 785 790 795 800 Leu Pro Pro Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser 805 810 815 Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys 820 825 830 Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr 835 840 845 Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser 850 855 860 Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser 865 870 875 880 Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr 885 890 895 Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys 900 905 910 Lys Val Glu Pro Lys Ser Cys 915 <210> 147 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 CDR-H1 <400> 147 Gly Tyr Tyr Ile His 1 5 <210> 148 <211> 17 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 CDR-H2 <400> 148 Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe Lys 1 5 10 15 Gly <210> 149 <211> 5 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 CDR-H3 <400> 149 Glu Gly Ile Tyr Trp 1 5 <210> 150 <211> 16 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 CDR-L1 <400> 150 Arg Ser Ser Gln Ser Leu Val His Ser Asn Gly Asn Thr Phe Leu His 1 5 10 15 <210> 151 <211> 7 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 CDR-L2 <400> 151 Thr Val Ser Asn Arg Phe Ser 1 5 <210> 152 <211> 9 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 CDR-L3 <400> 152 Ser Gln Thr Thr His Val Pro Trp Thr 1 5 <210> 153 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 VH <400> 153 Glu Val Gln Leu Val Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Ala Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Leu Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Leu Val Thr Val 100 105 110 Ser Ser <210> 154 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> hu CD40 VL <400> 154 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gln Gly Thr Lys Val Glu Ile Lys 100 105 110 <210> 155 <211> 926 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1799 <400> 155 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 115 120 125 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys 130 135 140 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 145 150 155 160 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 165 170 175 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 180 185 190 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 195 200 205 Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly 210 215 220 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 225 230 235 240 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 245 250 255 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 260 265 270 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 275 280 285 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 290 295 300 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 305 310 315 320 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 325 330 335 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 340 345 350 Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn 355 360 365 Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile 370 375 380 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 385 390 395 400 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys 405 410 415 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 420 425 430 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 435 440 445 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 450 455 460 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 465 470 475 480 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 485 490 495 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 500 505 510 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 515 520 525 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 530 535 540 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 545 550 555 560 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 565 570 575 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 580 585 590 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 595 600 605 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 610 615 620 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 625 630 635 640 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 645 650 655 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 660 665 670 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val 690 695 700 Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu 705 710 715 720 Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met 725 730 735 Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala 740 745 750 Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly 755 760 765 Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln 770 775 780 Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys 785 790 795 800 Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr 805 810 815 Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 820 825 830 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 835 840 845 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 850 855 860 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 865 870 875 880 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 885 890 895 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 900 905 910 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 156 <211> 915 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1799 <400> 156 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 115 120 125 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys 130 135 140 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 145 150 155 160 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 165 170 175 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 180 185 190 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 195 200 205 Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly 210 215 220 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 225 230 235 240 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 245 250 255 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 260 265 270 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 275 280 285 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 290 295 300 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 305 310 315 320 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 325 330 335 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 340 345 350 Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn 355 360 365 Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile 370 375 380 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 385 390 395 400 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val Ser Lys 405 410 415 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 420 425 430 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 435 440 445 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 450 455 460 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 465 470 475 480 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 485 490 495 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 500 505 510 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 515 520 525 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 530 535 540 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 545 550 555 560 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 565 570 575 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 580 585 590 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 595 600 605 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 610 615 620 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 625 630 635 640 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 645 650 655 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 660 665 670 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile 690 695 700 Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg 705 710 715 720 Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu 725 730 735 Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn 740 745 750 Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser 755 760 765 Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu 770 775 780 Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr 785 790 795 800 Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys 805 810 815 Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly 820 825 830 Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro 835 840 845 Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr 850 855 860 Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val 865 870 875 880 Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn 885 890 895 Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro 900 905 910 Lys Ser Cys 915 <210> 157 <211> 915 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1902 <400> 157 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 115 120 125 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys 130 135 140 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 145 150 155 160 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 165 170 175 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 180 185 190 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 195 200 205 Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly 210 215 220 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 225 230 235 240 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 245 250 255 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 260 265 270 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 275 280 285 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 290 295 300 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 305 310 315 320 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 325 330 335 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 340 345 350 Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn 355 360 365 Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile 370 375 380 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 385 390 395 400 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys 405 410 415 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 420 425 430 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 435 440 445 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 450 455 460 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 465 470 475 480 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 485 490 495 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 500 505 510 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 515 520 525 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 530 535 540 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 545 550 555 560 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 565 570 575 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 580 585 590 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 595 600 605 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 610 615 620 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 625 630 635 640 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 645 650 655 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 660 665 670 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile 690 695 700 Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg 705 710 715 720 Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu 725 730 735 Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn 740 745 750 Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser 755 760 765 Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu 770 775 780 Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr 785 790 795 800 Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys 805 810 815 Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly 820 825 830 Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro 835 840 845 Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr 850 855 860 Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val 865 870 875 880 Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn 885 890 895 Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro 900 905 910 Lys Ser Cys 915 <210> 158 <211> 926 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1902 <400> 158 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 115 120 125 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys 130 135 140 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 145 150 155 160 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 165 170 175 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 180 185 190 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 195 200 205 Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly 210 215 220 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 225 230 235 240 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 245 250 255 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 260 265 270 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 275 280 285 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 290 295 300 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 305 310 315 320 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 325 330 335 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 340 345 350 Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn 355 360 365 Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile 370 375 380 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 385 390 395 400 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val Ser Lys 405 410 415 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 420 425 430 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 435 440 445 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 450 455 460 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 465 470 475 480 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 485 490 495 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 500 505 510 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 515 520 525 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 530 535 540 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 545 550 555 560 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 565 570 575 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 580 585 590 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 595 600 605 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 610 615 620 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 625 630 635 640 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 645 650 655 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 660 665 670 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val 690 695 700 Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu 705 710 715 720 Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met 725 730 735 Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala 740 745 750 Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly 755 760 765 Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln 770 775 780 Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys 785 790 795 800 Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr 805 810 815 Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 820 825 830 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 835 840 845 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 850 855 860 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 865 870 875 880 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 885 890 895 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 900 905 910 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 159 <211> 926 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1800 <400> 159 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 115 120 125 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Lys 130 135 140 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 145 150 155 160 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 165 170 175 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 180 185 190 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 195 200 205 Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly 210 215 220 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 225 230 235 240 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 245 250 255 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 260 265 270 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 275 280 285 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 290 295 300 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 305 310 315 320 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 325 330 335 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 340 345 350 Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn 355 360 365 Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile 370 375 380 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 385 390 395 400 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys 405 410 415 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 420 425 430 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 435 440 445 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 450 455 460 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 465 470 475 480 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 485 490 495 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 500 505 510 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 515 520 525 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 530 535 540 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 545 550 555 560 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 565 570 575 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 580 585 590 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 595 600 605 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 610 615 620 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 625 630 635 640 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 645 650 655 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 660 665 670 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val 690 695 700 Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu 705 710 715 720 Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met 725 730 735 Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala 740 745 750 Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly 755 760 765 Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln 770 775 780 Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys 785 790 795 800 Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr 805 810 815 Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 820 825 830 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 835 840 845 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 850 855 860 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 865 870 875 880 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 885 890 895 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 900 905 910 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 160 <211> 915 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1800 <400> 160 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 115 120 125 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 130 135 140 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 145 150 155 160 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 165 170 175 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 180 185 190 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 195 200 205 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 210 215 220 Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala 225 230 235 240 Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro 245 250 255 Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val 260 265 270 Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 275 280 285 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 290 295 300 Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln 305 310 315 320 Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala 325 330 335 Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro 340 345 350 Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr 355 360 365 Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser 370 375 380 Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr 385 390 395 400 Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val 405 410 415 Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe 420 425 430 Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys 435 440 445 Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly 450 455 460 Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro 465 470 475 480 Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr 485 490 495 Gly Tyr Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu 500 505 510 Trp Val Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln 515 520 525 Lys Phe Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr 530 535 540 Ala Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 545 550 555 560 Tyr Cys Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val 565 570 575 Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala 580 585 590 Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu 595 600 605 Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly 610 615 620 Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser 625 630 635 640 Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu 645 650 655 Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr 660 665 670 Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile 690 695 700 Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg 705 710 715 720 Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu 725 730 735 Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn 740 745 750 Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser 755 760 765 Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu 770 775 780 Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr 785 790 795 800 Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys 805 810 815 Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly 820 825 830 Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro 835 840 845 Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr 850 855 860 Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val 865 870 875 880 Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn 885 890 895 Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro 900 905 910 Lys Ser Cys 915 <210> 161 <211> 926 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2052 <400> 161 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 115 120 125 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 130 135 140 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 145 150 155 160 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 165 170 175 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 180 185 190 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 195 200 205 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 210 215 220 Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala 225 230 235 240 Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro 245 250 255 Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val 260 265 270 Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 275 280 285 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 290 295 300 Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln 305 310 315 320 Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala 325 330 335 Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro 340 345 350 Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr 355 360 365 Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser 370 375 380 Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr 385 390 395 400 Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr 405 410 415 Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe 420 425 430 Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys 435 440 445 Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly 450 455 460 Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro 465 470 475 480 Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr 485 490 495 Gly Tyr Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu 500 505 510 Trp Val Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln 515 520 525 Lys Phe Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr 530 535 540 Ala Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 545 550 555 560 Tyr Cys Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val 565 570 575 Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala 580 585 590 Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu 595 600 605 Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly 610 615 620 Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser 625 630 635 640 Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu 645 650 655 Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr 660 665 670 Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val 690 695 700 Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu 705 710 715 720 Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met 725 730 735 Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala 740 745 750 Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly 755 760 765 Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln 770 775 780 Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys 785 790 795 800 Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr 805 810 815 Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 820 825 830 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 835 840 845 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 850 855 860 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 865 870 875 880 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 885 890 895 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 900 905 910 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 162 <211> 915 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2052 <400> 162 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 115 120 125 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 130 135 140 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 145 150 155 160 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 165 170 175 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 180 185 190 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 195 200 205 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 210 215 220 Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala 225 230 235 240 Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro 245 250 255 Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val 260 265 270 Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 275 280 285 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 290 295 300 Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln 305 310 315 320 Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala 325 330 335 Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro 340 345 350 Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr 355 360 365 Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser 370 375 380 Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr 385 390 395 400 Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val 405 410 415 Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe 420 425 430 Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys 435 440 445 Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly 450 455 460 Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro 465 470 475 480 Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr 485 490 495 Gly Tyr Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu 500 505 510 Trp Val Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln 515 520 525 Lys Phe Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr 530 535 540 Ala Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 545 550 555 560 Tyr Cys Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val 565 570 575 Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala 580 585 590 Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu 595 600 605 Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly 610 615 620 Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser 625 630 635 640 Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu 645 650 655 Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr 660 665 670 Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile 690 695 700 Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg 705 710 715 720 Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu 725 730 735 Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn 740 745 750 Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser 755 760 765 Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu 770 775 780 Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr 785 790 795 800 Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys 805 810 815 Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly 820 825 830 Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro 835 840 845 Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr 850 855 860 Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val 865 870 875 880 Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn 885 890 895 Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro 900 905 910 Lys Ser Cys 915 <210> 163 <211> 915 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE1901 <400> 163 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 115 120 125 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 130 135 140 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 145 150 155 160 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 165 170 175 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 180 185 190 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 195 200 205 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 210 215 220 Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala 225 230 235 240 Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro 245 250 255 Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val 260 265 270 Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 275 280 285 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 290 295 300 Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln 305 310 315 320 Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala 325 330 335 Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro 340 345 350 Arg Glu Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr 355 360 365 Lys Asn Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser 370 375 380 Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr 385 390 395 400 Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr 405 410 415 Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe 420 425 430 Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys 435 440 445 Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly 450 455 460 Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro 465 470 475 480 Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr 485 490 495 Gly Tyr Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu 500 505 510 Trp Val Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln 515 520 525 Lys Phe Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr 530 535 540 Ala Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 545 550 555 560 Tyr Cys Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val 565 570 575 Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala 580 585 590 Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu 595 600 605 Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly 610 615 620 Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser 625 630 635 640 Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu 645 650 655 Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr 660 665 670 Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile 690 695 700 Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg 705 710 715 720 Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu 725 730 735 Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn 740 745 750 Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser 755 760 765 Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu 770 775 780 Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr 785 790 795 800 Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys 805 810 815 Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly 820 825 830 Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro 835 840 845 Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr 850 855 860 Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val 865 870 875 880 Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn 885 890 895 Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro 900 905 910 Lys Ser Cys 915 <210> 164 <211> 926 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE1901 <400> 164 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Glu 115 120 125 Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 130 135 140 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 145 150 155 160 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 165 170 175 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 180 185 190 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 195 200 205 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 210 215 220 Gly Gly Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala 225 230 235 240 Pro Glu Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro 245 250 255 Lys Asp Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val 260 265 270 Val Asp Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val 275 280 285 Asp Gly Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln 290 295 300 Tyr Asn Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln 305 310 315 320 Asp Trp Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala 325 330 335 Leu Gly Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro 340 345 350 Arg Glu Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr 355 360 365 Lys Asn Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser 370 375 380 Asp Ile Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr 385 390 395 400 Lys Thr Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val 405 410 415 Ser Lys Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe 420 425 430 Ser Cys Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys 435 440 445 Ser Leu Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly 450 455 460 Gly Ser Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro 465 470 475 480 Gly Gly Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr 485 490 495 Gly Tyr Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu 500 505 510 Trp Val Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln 515 520 525 Lys Phe Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr 530 535 540 Ala Tyr Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr 545 550 555 560 Tyr Cys Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val 565 570 575 Thr Val Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala 580 585 590 Pro Ser Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu 595 600 605 Val Lys Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly 610 615 620 Ala Leu Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser 625 630 635 640 Gly Leu Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu 645 650 655 Gly Thr Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr 660 665 670 Lys Val Asp Lys Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val 690 695 700 Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu 705 710 715 720 Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met 725 730 735 Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala 740 745 750 Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly 755 760 765 Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln 770 775 780 Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys 785 790 795 800 Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr 805 810 815 Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 820 825 830 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 835 840 845 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 850 855 860 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 865 870 875 880 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 885 890 895 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 900 905 910 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 165 <211> 926 <212> PRT <213> Artificial Sequence <220> <223> first fusion polypeptide (Fc knob) P1AE2255 <400> 165 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 115 120 125 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Glu 130 135 140 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 145 150 155 160 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 165 170 175 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 180 185 190 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 195 200 205 Asp Glu Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly 210 215 220 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 225 230 235 240 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 245 250 255 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 260 265 270 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 275 280 285 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 290 295 300 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 305 310 315 320 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 325 330 335 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 340 345 350 Pro Gln Val Tyr Thr Leu Pro Pro Cys Arg Asp Glu Leu Thr Lys Asn 355 360 365 Gln Val Ser Leu Trp Cys Leu Val Lys Gly Phe Tyr Pro Ser Asp Ile 370 375 380 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 385 390 395 400 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Tyr Ser Lys 405 410 415 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 420 425 430 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 435 440 445 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 450 455 460 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 465 470 475 480 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 485 490 495 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 500 505 510 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 515 520 525 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 530 535 540 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 545 550 555 560 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 565 570 575 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Arg 580 585 590 Lys Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 595 600 605 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 610 615 620 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 625 630 635 640 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 645 650 655 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 660 665 670 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Val 690 695 700 Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly Ser Leu 705 710 715 720 Arg Leu Ser Cys Ala Ala Ser Gly Phe Thr Phe Ser Ser Tyr Ala Met 725 730 735 Ser Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val Ser Ala 740 745 750 Ile Ile Gly Ser Gly Ala Ser Thr Tyr Tyr Ala Asp Ser Val Lys Gly 755 760 765 Arg Phe Thr Ile Ser Arg Asp Asn Ser Lys Asn Thr Leu Tyr Leu Gln 770 775 780 Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys Ala Lys 785 790 795 800 Gly Trp Phe Gly Gly Phe Asn Tyr Trp Gly Gln Gly Thr Leu Val Thr 805 810 815 Val Ser Ser Ala Ser Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro 820 825 830 Ser Asp Glu Gln Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu 835 840 845 Asn Asn Phe Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn 850 855 860 Ala Leu Gln Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser 865 870 875 880 Lys Asp Ser Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala 885 890 895 Asp Tyr Glu Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly 900 905 910 Leu Ser Ser Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys 915 920 925 <210> 166 <211> 915 <212> PRT <213> Artificial Sequence <220> <223> second fusion polypeptide (Fc hole) P1AE2255 <400> 166 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser Ala Ser Thr Lys Gly Pro Ser Val Phe Pro Leu Ala Pro Ser 115 120 125 Ser Lys Ser Thr Ser Gly Gly Thr Ala Ala Leu Gly Cys Leu Val Glu 130 135 140 Asp Tyr Phe Pro Glu Pro Val Thr Val Ser Trp Asn Ser Gly Ala Leu 145 150 155 160 Thr Ser Gly Val His Thr Phe Pro Ala Val Leu Gln Ser Ser Gly Leu 165 170 175 Tyr Ser Leu Ser Ser Val Val Thr Val Pro Ser Ser Ser Leu Gly Thr 180 185 190 Gln Thr Tyr Ile Cys Asn Val Asn His Lys Pro Ser Asn Thr Lys Val 195 200 205 Asp Glu Lys Val Glu Pro Lys Ser Cys Gly Gly Gly Gly Ser Gly Gly 210 215 220 Gly Gly Ser Asp Lys Thr His Thr Cys Pro Pro Cys Pro Ala Pro Glu 225 230 235 240 Ala Ala Gly Gly Pro Ser Val Phe Leu Phe Pro Pro Lys Pro Lys Asp 245 250 255 Thr Leu Met Ile Ser Arg Thr Pro Glu Val Thr Cys Val Val Val Asp 260 265 270 Val Ser His Glu Asp Pro Glu Val Lys Phe Asn Trp Tyr Val Asp Gly 275 280 285 Val Glu Val His Asn Ala Lys Thr Lys Pro Arg Glu Glu Gln Tyr Asn 290 295 300 Ser Thr Tyr Arg Val Val Ser Val Leu Thr Val Leu His Gln Asp Trp 305 310 315 320 Leu Asn Gly Lys Glu Tyr Lys Cys Lys Val Ser Asn Lys Ala Leu Gly 325 330 335 Ala Pro Ile Glu Lys Thr Ile Ser Lys Ala Lys Gly Gln Pro Arg Glu 340 345 350 Pro Gln Val Cys Thr Leu Pro Pro Ser Arg Asp Glu Leu Thr Lys Asn 355 360 365 Gln Val Ser Leu Ser Cys Ala Val Lys Gly Phe Tyr Pro Ser Asp Ile 370 375 380 Ala Val Glu Trp Glu Ser Asn Gly Gln Pro Glu Asn Asn Tyr Lys Thr 385 390 395 400 Thr Pro Pro Val Leu Asp Ser Asp Gly Ser Phe Phe Leu Val Ser Lys 405 410 415 Leu Thr Val Asp Lys Ser Arg Trp Gln Gln Gly Asn Val Phe Ser Cys 420 425 430 Ser Val Met His Glu Ala Leu His Asn His Tyr Thr Gln Lys Ser Leu 435 440 445 Ser Leu Ser Pro Gly Lys Gly Gly Gly Gly Ser Gly Gly Gly Gly Ser 450 455 460 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 465 470 475 480 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 485 490 495 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 500 505 510 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 515 520 525 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 530 535 540 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 545 550 555 560 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 565 570 575 Arg Thr Val Ala Ala Pro Ser Val Phe Ile Phe Pro Pro Ser Asp Arg 580 585 590 Lys Leu Lys Ser Gly Thr Ala Ser Val Val Cys Leu Leu Asn Asn Phe 595 600 605 Tyr Pro Arg Glu Ala Lys Val Gln Trp Lys Val Asp Asn Ala Leu Gln 610 615 620 Ser Gly Asn Ser Gln Glu Ser Val Thr Glu Gln Asp Ser Lys Asp Ser 625 630 635 640 Thr Tyr Ser Leu Ser Ser Thr Leu Thr Leu Ser Lys Ala Asp Tyr Glu 645 650 655 Lys His Lys Val Tyr Ala Cys Glu Val Thr His Gln Gly Leu Ser Ser 660 665 670 Pro Val Thr Lys Ser Phe Asn Arg Gly Glu Cys Gly Gly Gly Gly Ser 675 680 685 Gly Gly Gly Gly Ser Gly Gly Gly Ser Gly Gly Gly Gly Ser Glu Ile 690 695 700 Val Leu Thr Gln Ser Pro Gly Thr Leu Ser Leu Ser Pro Gly Glu Arg 705 710 715 720 Ala Thr Leu Ser Cys Arg Ala Ser Gln Ser Val Thr Ser Ser Tyr Leu 725 730 735 Ala Trp Tyr Gln Gln Lys Pro Gly Gln Ala Pro Arg Leu Leu Ile Asn 740 745 750 Val Gly Ser Arg Arg Ala Thr Gly Ile Pro Asp Arg Phe Ser Gly Ser 755 760 765 Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile Ser Arg Leu Glu Pro Glu 770 775 780 Asp Phe Ala Val Tyr Tyr Cys Gln Gln Gly Ile Met Leu Pro Pro Thr 785 790 795 800 Phe Gly Gln Gly Thr Lys Val Glu Ile Lys Ser Ser Ala Ser Thr Lys 805 810 815 Gly Pro Ser Val Phe Pro Leu Ala Pro Ser Ser Lys Ser Thr Ser Gly 820 825 830 Gly Thr Ala Ala Leu Gly Cys Leu Val Lys Asp Tyr Phe Pro Glu Pro 835 840 845 Val Thr Val Ser Trp Asn Ser Gly Ala Leu Thr Ser Gly Val His Thr 850 855 860 Phe Pro Ala Val Leu Gln Ser Ser Gly Leu Tyr Ser Leu Ser Ser Val 865 870 875 880 Val Thr Val Pro Ser Ser Ser Leu Gly Thr Gln Thr Tyr Ile Cys Asn 885 890 895 Val Asn His Lys Pro Ser Asn Thr Lys Val Asp Lys Lys Val Glu Pro 900 905 910 Lys Ser Cys 915 <210> 167 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH1a (CD40) <400> 167 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ala 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Gln Ser Leu Glu Trp Met 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Val Thr Leu Thr Val Asp Lys Ser Ile Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Arg Leu Arg Ser Asp Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 168 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH1b (CD40) <400> 168 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ala 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Ser Leu Glu Trp Met 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Val Thr Leu Thr Val Asp Lys Ser Ile Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Arg Leu Arg Ser Asp Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 169 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH1c (CD40) <400> 169 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ala 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Gln Ser Leu Glu Trp Met 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Val Thr Leu Thr Val Asp Lys Ser Ile Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Arg Leu Arg Ser Asp Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly His Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 170 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH1d (CD40) <400> 170 Gln Val Gln Leu Val Gln Ser Gly Ala Glu Val Lys Lys Pro Gly Ala 1 5 10 15 Ser Val Lys Val Ser Cys Lys Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Gln Ser Leu Glu Trp Met 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Val Thr Leu Ser Val Asp Lys Ser Ile Ser Thr Ala Tyr 65 70 75 80 Met Glu Leu Ser Arg Leu Arg Ser Asp Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 171 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL1a (CD40) <400> 171 Asp Ile Val Met Thr Gln Thr Pro Leu Ser Leu Ser Val Thr Pro Gly 1 5 10 15 Gln Pro Ala Ser Ile Ser Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Leu Gln Lys Pro Gly Gln Ser 35 40 45 Pro Gln Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Asp Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Lys Ile 65 70 75 80 Ser Arg Val Glu Ala Glu Asp Val Gly Val Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 <210> 172 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL1b (CD40) <400> 172 Asp Ile Val Val Thr Gln Thr Pro Leu Ser Leu Ser Val Thr Pro Gly 1 5 10 15 Gln Pro Ala Ser Ile Ser Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Leu Gln Lys Pro Gly Gln Ser 35 40 45 Pro Gln Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Asp Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Lys Ile 65 70 75 80 Ser Arg Val Glu Ala Glu Asp Val Gly Val Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 <210> 173 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL1c (CD40) <400> 173 Asp Val Val Val Thr Gln Thr Pro Leu Ser Leu Ser Val Thr Pro Gly 1 5 10 15 Gln Pro Ala Ser Ile Ser Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Leu Gln Lys Pro Gly Gln Ser 35 40 45 Pro Gln Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Asp Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Lys Ile 65 70 75 80 Ser Arg Val Glu Ala Glu Asp Val Gly Val Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 <210> 174 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL1d (CD40) <400> 174 Asp Val Val Val Thr Gln Thr Pro Leu Ser Leu Ser Val Thr Pro Gly 1 5 10 15 Gln Pro Ala Ser Ile Ser Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Leu Gln Lys Pro Gly Gln Ser 35 40 45 Pro Gln Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Asp Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Lys Ile 65 70 75 80 Ser Arg Val Glu Ala Glu Asp Val Gly Val Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Leu Glu Ile Lys 100 105 110 <210> 175 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH2a (CD40) <400> 175 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 176 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH2b (CD40) <400> 176 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Ser Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 177 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH2c (CD40) <400> 177 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly His Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 178 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH2d (CD40) <400> 178 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Gly Asp Ser Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 179 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH2ab (CD40) <400> 179 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Met His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Phe 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 180 <211> 114 <212> PRT <213> Artificial Sequence <220> <223> VH2ac (CD40) <400> 180 Glu Val Gln Leu Leu Glu Ser Gly Gly Gly Leu Val Gln Pro Gly Gly 1 5 10 15 Ser Leu Arg Leu Ser Cys Ala Ala Ser Gly Tyr Ser Phe Thr Gly Tyr 20 25 30 Tyr Ile His Trp Val Arg Gln Ala Pro Gly Lys Gly Leu Glu Trp Val 35 40 45 Gly Arg Val Ile Pro Asn Ala Gly Gly Thr Ser Tyr Asn Gln Lys Val 50 55 60 Lys Gly Arg Phe Thr Ile Ser Val Asp Asn Ser Lys Asn Thr Ala Tyr 65 70 75 80 Leu Gln Met Asn Ser Leu Arg Ala Glu Asp Thr Ala Val Tyr Tyr Cys 85 90 95 Ala Arg Glu Gly Ile Tyr Trp Trp Gly Gln Gly Thr Thr Val Thr Val 100 105 110 Ser Ser <210> 181 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL2a (CD40) <400> 181 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 <210> 182 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL2b (CD40) <400> 182 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Gln Ser 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 <210> 183 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL2ab (CD40) <400> 183 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ala Ser Gln Ser Leu Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110 <210> 184 <211> 112 <212> PRT <213> Artificial Sequence <220> <223> VL2ac (CD40) <400> 184 Asp Ile Gln Met Thr Gln Ser Pro Ser Ser Leu Ser Ala Ser Val Gly 1 5 10 15 Asp Arg Val Thr Ile Thr Cys Arg Ser Ser Gln Ser Ile Val His Ser 20 25 30 Asn Gly Asn Thr Phe Leu His Trp Tyr Gln Gln Lys Pro Gly Lys Ala 35 40 45 Pro Lys Leu Leu Ile Tyr Thr Val Ser Asn Arg Phe Ser Gly Val Pro 50 55 60 Ser Arg Phe Ser Gly Ser Gly Ser Gly Thr Asp Phe Thr Leu Thr Ile 65 70 75 80 Ser Ser Leu Gln Pro Glu Asp Phe Ala Thr Tyr Phe Cys Ser Gln Thr 85 90 95 Thr His Val Pro Trp Thr Phe Gly Gly Gly Thr Lys Val Glu Ile Lys 100 105 110
Claims (33)

  1. 2개의 융합 폴리펩티드로 이루어지고 제1 표적에 특이적으로 결합가능한 2개의 항원 결합 도메인 및 제2 표적에 특이적으로 결합가능한 하나의 항원 결합 도메인을 포함하는 이중특이성 항체로서,
    (a) 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분, 스페이서(spacer) 도메인, 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분을 포함하는 제1 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제1 융합 폴리펩티드; 및
    (b) 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분, 스페이서 도메인, 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분 및 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분을 포함하는 제2 융합 폴리펩티드로서, 상기 스페이서 도메인이 25개 이상의 아미노산 잔기를 포함하는 폴리펩티드이고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분이 상기 스페이서 도메인의 N-말단에 직접적으로 또는 제1 펩티드 연결자를 통해 융합되고, 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분이 상기 스페이서 도메인의 C-말단에 직접적으로 또는 제2 펩티드 연결자를 통해 융합되고, 상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되거나 상기 제1 표적에 특이적으로 결합가능한 제2 항원 결합 도메인의 제1 부분의 N-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는, 제2 융합 폴리펩티드
    를 포함하고,
    상기 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 제2 표적에 특이적으로 결합가능한 항원 결합 도메인을 형성하고, 상기 제1 표적에 특이적으로 결합가능한 제1 항원 및 제2 항원 결합 도메인의 제1 부분 및 제2 부분이 서로 회합되어 고리형 융합 폴리펩티드를 형성하고,
    상기 제1 융합 폴리펩티드의 스페이서 도메인 및 상기 제2 융합 폴리펩티드의 스페이서 도메인이 다이설파이드 결합에 의해 서로 공유결합으로 회합되고 상기 제1 융합 폴리펩티드와 상기 제2 융합 폴리펩티드의 회합을 촉진하는 변형을 포함하는,
    이중특이성 항체.
  2. 제1항에 있어서,
    제1 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되고;
    제2 융합 폴리펩티드에서, 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 상기 제1 표적에 특이적으로 결합가능한 제1 항원 결합 도메인의 제2 부분의 C-말단에 직접적으로 또는 제3 펩티드 연결자를 통해 융합되는,
    이중특이성 항체.
  3. 제1항 또는 제2항에 있어서,
    제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분 또는 제2 부분을 연결하는 제3 펩티드 연결자가 15개 이상의 아미노산을 포함하는, 이중특이성 항체.
  4. 제1항 내지 제3항 중 어느 한 항에 있어서,
    제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하고, 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하거나;
    제1 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 경쇄 가변 도메인을 포함하고, 제2 융합 폴리펩티드가 제2 표적에 특이적으로 결합가능한 항원 결합 도메인의 중쇄 가변 도메인을 포함하는, 이중특이성 항체.
  5. 제1항 내지 제4항 중 어느 한 항에 있어서,
    제1 융합 폴리펩티드 및 제2 융합 폴리펩티드에서,
    제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제1 부분이 중쇄 Fab 단편이고;
    제1 표적에 특이적으로 결합가능한 항원 결합 도메인의 제2 부분이 경쇄 Fab 단편인, 이중특이성 항체.
  6. 제1항 내지 제5항 중 어느 한 항에 있어서,
    스페이서 도메인이 항체 경첩부(hinge region) 또는 이의 단편, 항체 CH2 도메인, 및 항체 CH3 도메인 또는 이의 단편을 포함하는, 이중특이성 항체.
  7. 제1항 내지 제6항 중 어느 한 항에 있어서,
    스페이서 도메인이 항체 경첩부 또는 이의 단편 및 IgG1 Fc 도메인을 포함하는, 이중특이성 항체.
  8. 제1항 내지 제7항 중 어느 한 항에 있어서,
    놉 인투 홀 방법(knobs into hole method)에 따라,
    제1 융합 폴리펩티드의 스페이서 도메인이 홀을 포함하고;
    제2 융합 폴리펩티드의 스페이서 도메인이 놉을 포함하는, 이중특이성 항체.
  9. 제1항 내지 제8항 중 어느 한 항에 있어서,
    IgG1 Fc 도메인이 (카밧 EU 색인(Kabat EU index)에 따른 번호부여로) L234A, L235A 및 P329G의 아미노산 치환을 포함하는, 이중특이성 항체.
  10. 제1항 내지 제9항 중 어느 한 항에 있어서,
    제2 표적에 특이적으로 결합가능한 항원 결합 도메인이 종양 관련 항원에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체.
  11. 제1항 내지 제10항 중 어느 한 항에 있어서,
    제2 표적에 특이적으로 결합가능한 항원 결합 도메인이 섬유아세포 활성화 단백질(FAP)에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체.
  12. 제1항 내지 제11항 중 어느 한 항에 있어서,
    FAP에 특이적으로 결합가능한 항원 결합 도메인이
    (a) (i) 서열번호 1의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 2의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 3의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHFAP), 및 (iv) 서열번호 4의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 5의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 6의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLFAP); 또는
    (b) (i) 서열번호 9의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 10의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 11의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHFAP), 및 (iv) 서열번호 12의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 13의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 14의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLFAP)
    를 포함하는, 이중특이성 항체.
  13. 제1항 내지 제12항 중 어느 한 항에 있어서,
    FAP에 특이적으로 결합가능한 항원 결합 도메인이
    (a) 서열번호 7의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHFAP), 및 서열번호 8의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 경쇄 가변부(VLFAP); 또는
    (b) 서열번호 15의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHFAP), 및 서열번호 16의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 경쇄 가변부(VLFAP)
    를 포함하는, 이중특이성 항체.
  14. 제1항 내지 제13항 중 어느 한 항에 있어서,
    제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 OX40에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체.
  15. 제1항 내지 제14항 중 어느 한 항에 있어서,
    OX40에 특이적으로 결합가능한 항원 결합 도메인이
    (a) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 22의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 35의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
    (b) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 21의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 34의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
    (c) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 23의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 36의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
    (d) (i) 서열번호 17의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 19의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 24의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 28의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 31의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 37의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
    (e) (i) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 25의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 29의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 32의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 38의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40);
    (f) (i) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 26의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 29의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 32의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 38의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40); 또는
    (g) (i) 서열번호 18의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 20의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 27의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHOH40), 및 (iv) 서열번호 30의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 33의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 39의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLOH40)
    를 포함하는, 이중특이성 항체.
  16. 제1항 내지 제15항 중 어느 한 항에 있어서,
    OH40에 특이적으로 결합가능한 항원 결합 도메인이
    (a) 서열번호 40의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 41의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
    (b) 서열번호 42의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 43의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
    (c) 서열번호 44의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 45의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
    (d) 서열번호 46의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 47의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
    (e) 서열번호 48의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 49의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40);
    (f) 서열번호 50의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 51의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40); 또는
    (g) 서열번호 52의 아미노산 서열을 포함하는 중쇄 가변부(VHOX40) 및 서열번호 53의 아미노산 서열을 포함하는 경쇄 가변부(VLOX40)
    를 포함하는, 이중특이성 항체.
  17. 제1항 내지 제15항 중 어느 한 항에 있어서,
    OH40에 특이적으로 결합가능한 항원 결합 도메인이
    (a) 서열번호 40의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHOX40), 및 서열번호 41의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VLOX40)
    를 포함하는, 이중특이성 항체.
  18. 제1항 내지 제13항 중 어느 한 항에 있어서,
    제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 4-1BB에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체.
  19. 제1항 내지 제13항 및 제18항 중 어느 한 항에 있어서,
    4-1BB에 특이적으로 결합가능한 항원 결합 도메인이
    (i) 서열번호 135의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 136의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 137의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VH4-1BB), 및 (iv) 서열번호 138의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 139의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 140의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VL4-1BB)
    를 포함하는, 이중특이성 항체.
  20. 제1항 내지 제13항, 제18항 및 제19항 중 어느 한 항에 있어서,
    4-1BB에 특이적으로 결합가능한 항원 결합 도메인이
    서열번호 141의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VH4-1BB), 및 서열번호 142의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VL4-1BB)
    를 포함하는, 이중특이성 항체.
  21. 제1항 내지 제13항 중 어느 한 항에 있어서,
    제1 표적에 특이적으로 결합가능한 항원 결합 도메인이 CD40에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체.
  22. 제1항 내지 제13항 및 제21항 중 어느 한 항에 있어서,
    CD40에 특이적으로 결합가능한 항원 결합 도메인이
    (i) 서열번호 147의 아미노산 서열을 포함하는 CDR-H1, (ii) 서열번호 148의 아미노산 서열을 포함하는 CDR-H2 및 (iii) 서열번호 149의 아미노산 서열을 포함하는 CDR-H3을 포함하는 중쇄 가변부(VHCD40), 및 (iv) 서열번호 150의 아미노산 서열을 포함하는 CDR-L1, (v) 서열번호 151의 아미노산 서열을 포함하는 CDR-L2 및 (vi) 서열번호 152의 아미노산 서열을 포함하는 CDR-L3을 포함하는 경쇄 가변부(VLCD40)
    를 포함하는, 이중특이성 항체.
  23. 제1항 내지 제13항, 제21항 및 제22항 중 어느 한 항에 있어서,
    CD40에 특이적으로 결합가능한 항원 결합 도메인이
    서열번호 153의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 154의 아미노산 서열과 적어도 약 95%, 96%, 97%, 98%, 99% 또는 100% 일치하는 아미노산 서열을 포함하는 중쇄 가변부(VLCD40)
    를 포함하는, 이중특이성 항체.
  24. 제1항 내지 제13항, 제21항 및 제22항 중 어느 한 항에 있어서,
    제1 표적에 특이적으로 결합가능한 항원 결합 도메인이
    (i) 서열번호 167, 서열번호 168, 서열번호 169 및 서열번호 170으로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 171, 서열번호 172, 서열번호 173 및 서열번호 174로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 경쇄 가변부(VLCD40); 또는
    (ii) 서열번호 175, 서열번호 176, 서열번호 177, 서열번호 178, 서열번호 179 및 서열번호 180으로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 중쇄 가변부(VHCD40), 및 서열번호 181, 서열번호 182, 서열번호 183 및 서열번호 184로 이루어진 군으로부터 선택되는 아미노산 서열을 포함하는 경쇄 가변부(VLCD40)
    를 포함하는 CD40에 특이적으로 결합가능한 항원 결합 도메인인, 이중특이성 항체.
  25. 제1항 내지 제24항 중 어느 한 항의 이중특이성 항체를 암호화하는 단리된 핵산.
  26. 제25항의 핵산을 포함하는 벡터 또는 숙주 세포.
  27. 이중특이성 항체의 발현에 적합한 조건하에 제26항의 숙주 세포를 배양하는 이중특이성 항체의 제조 방법.
  28. 제1항 내지 제24항 중 어느 한 항의 이중특이성 항체 및 약학적으로 허용되는 부형제를 포함하는 약학 조성물.
  29. 약제로서 사용하기 위한 제1항 내지 제24항 중 어느 한 항의 이중특이성 항체 또는 제28항의 약학 조성물.
  30. 암 또는 감염성 질환의 치료에 사용하기 위한 제1항 내지 제24항 중 어느 한 항의 이중특이성 항체 또는 제28항의 약학 조성물.
  31. (i) T 세포 반응 촉진;
    (ii) 활성화된 T 세포의 생존 지원;
    (iii) 감염 치료;
    (iv) 암 치료;
    (v) 암의 진행의 지연; 또는
    (vi) 암을 앓는 환자의 생존 연장
    에 사용하기 위한 약제에서 제1항 내지 제24항 중 어느 한 항의 이중특이성 항체 또는 제28항의 약학 조성물의 용도.
  32. 효과량의 제1항 내지 제24항 중 어느 한 항의 이중특이성 항체 또는 제28항의 약학 조성물을 암 또는 감염성 질환을 갖는 개체에게 투여하는 단계를 포함하는 상기 개체를 치료하는 방법.
  33. 제32항에 있어서,
    개체에게 추가적인 치료제를 투여하는 단계를 추가로 포함하는 방법.
KR1020207011913A 2017-11-01 2018-10-31 이중특이성 2+1 컨터체 Ceased KR20200079492A (ko)

Applications Claiming Priority (3)

Application Number Priority Date Filing Date Title
EP17199537.6 2017-11-01
EP17199537 2017-11-01
PCT/EP2018/079785 WO2019086500A2 (en) 2017-11-01 2018-10-31 Bispecific 2+1 contorsbodies

Publications (1)

Publication Number Publication Date
KR20200079492A true KR20200079492A (ko) 2020-07-03

Family

ID=60201893

Family Applications (1)

Application Number Title Priority Date Filing Date
KR1020207011913A Ceased KR20200079492A (ko) 2017-11-01 2018-10-31 이중특이성 2+1 컨터체

Country Status (19)

Country Link
US (1) US12227594B2 (ko)
EP (1) EP3703821A2 (ko)
JP (1) JP7098725B2 (ko)
KR (1) KR20200079492A (ko)
CN (1) CN111182944B (ko)
AU (1) AU2018357923A1 (ko)
BR (1) BR112020006443A2 (ko)
CA (1) CA3076027A1 (ko)
CL (1) CL2020000662A1 (ko)
CR (1) CR20200171A (ko)
IL (1) IL272747B2 (ko)
MA (1) MA50505A (ko)
MX (1) MX2020004571A (ko)
MY (1) MY205342A (ko)
PE (1) PE20210844A1 (ko)
SG (1) SG11202002903XA (ko)
TW (1) TWI829658B (ko)
WO (1) WO2019086500A2 (ko)
ZA (1) ZA202001139B (ko)

Families Citing this family (30)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
ES2788979T3 (es) 2014-11-14 2020-10-23 Hoffmann La Roche Moléculas de unión a antígeno que comprenden un trímero de ligando de la familia de TNF
JP6996979B2 (ja) 2015-03-31 2022-02-04 エフ・ホフマン-ラ・ロシュ・アクチェンゲゼルシャフト 三量体tnfファミリーリガンドを含む抗原結合分子
MY206406A (en) 2015-10-02 2024-12-16 Hoffmann La Roche Bispecific antibodies specific for a costimulatory tnf receptor
JP6675017B2 (ja) * 2016-05-02 2020-04-01 エフ.ホフマン−ラ ロシュ アーゲーF. Hoffmann−La Roche Aktiengesellschaft コントースボディ−単鎖標的結合物質
JP7125400B2 (ja) 2016-12-19 2022-08-24 エフ・ホフマン-ラ・ロシュ・アクチェンゲゼルシャフト 標的化4-1bb(cd137)アゴニストとの併用療法
KR102692708B1 (ko) 2016-12-20 2024-08-07 에프. 호프만-라 로슈 아게 항-cd20/항-cd3 이중특이성 항체 및 4-1bb(cd137) 작용물질의 병용 요법
CA3047070A1 (en) 2017-01-03 2018-07-12 F.Hoffmann-La Roche Ag Bispecific antigen binding molecules comprising anti-4-1bb clone 20h4.9
WO2018178055A1 (en) * 2017-03-29 2018-10-04 F. Hoffmann-La Roche Ag Bispecific antigen binding molecule for a costimulatory tnf receptor
WO2018178076A1 (en) 2017-03-29 2018-10-04 F. Hoffmann-La Roche Ag Bispecific antigen binding molecule for a costimulatory tnf receptor
KR102461885B1 (ko) 2017-04-03 2022-11-03 에프. 호프만-라 로슈 아게 항-pd-1 항체와 돌연변이 il-2 또는 il-15의 면역접합체
CN110402255B (zh) 2017-04-04 2022-12-02 豪夫迈·罗氏有限公司 新颖的能够特异性结合cd40和fap的双特异性抗原结合分子
BR112020008031A2 (pt) * 2017-11-01 2020-10-27 F. Hoffmann-La Roche Ag anticorpo multiespecíficos, método para a preparação do anticorpo multiespecífico, conjunto de ácidos nucleicos, vetor de expressão, célula hospedeira e composição farmacêutica
WO2019136405A1 (en) 2018-01-05 2019-07-11 City Of Hope Multi-specific ligand binders
TWI841551B (zh) 2018-03-13 2024-05-11 瑞士商赫孚孟拉羅股份公司 使用靶向4-1bb (cd137)之促效劑的組合療法
CR20200459A (es) 2018-04-13 2020-11-11 Hoffmann La Roche Moléculas de unión a antígeno dirigidas a her2 que comprendan 4-1bbl
US11242396B2 (en) 2018-10-01 2022-02-08 Hoffmann-La Roche Inc. Bispecific antigen binding molecules comprising anti-FAP clone 212
CR20210326A (es) 2018-12-21 2021-09-10 Hoffmann La Roche Moléculas agonistas de unión al antígeno cd28 que actúan sobre el tumor
EP3959237A1 (en) * 2019-04-25 2022-03-02 F. Hoffmann-La Roche AG Therapeutic multispecific polypeptides activated by polypeptide chain exchange
JP7812230B2 (ja) * 2019-04-25 2026-02-09 エフ. ホフマン-ラ ロシュ アーゲー ポリペプチド鎖交換による抗体由来ポリペプチドの生成
AU2020263910A1 (en) * 2019-04-25 2021-10-21 F. Hoffmann-La Roche Ag Activatable therapeutic multispecific polypeptides with extended half-life
CA3140385A1 (en) * 2019-05-15 2020-11-19 Kyowa Kirin Co., Ltd. Bispecific antibody binding to cd40 and fap
EP3990492A1 (en) * 2019-06-27 2022-05-04 F. Hoffmann-La Roche AG Novel icos antibodies and tumor-targeted antigen binding molecules comprising them
AR121706A1 (es) 2020-04-01 2022-06-29 Hoffmann La Roche Moléculas de unión a antígeno biespecíficas dirigidas a ox40 y fap
JP2023504675A (ja) * 2020-05-19 2023-02-06 ベーリンガー インゲルハイム インターナショナル ゲゼルシャフト ミット ベシュレンクテル ハフツング ガンの処置のための結合分子
CR20240246A (es) * 2021-12-20 2024-07-19 Hoffmann La Roche Anticuerpos agonistas anti-ltbr y anticuerpos biespecificos que los comprenden
EP4540290A4 (en) * 2022-06-14 2026-07-01 Invenra Inc Multi-species liaison agents targeting B7H3 and GD2, and their uses
JP2025528212A (ja) * 2022-08-18 2025-08-26 イムノコア リミテッド 複数ドメイン結合性分子
US20260193634A1 (en) * 2022-11-10 2026-07-09 The Johns Hopkins University System For Modulating Receptor Tyrosine Kinase Signaling And Methods Of Use Thereof
TW202436358A (zh) * 2023-03-01 2024-09-16 大陸商江蘇恆瑞醫藥股份有限公司 Fap/4-1bb/cd40結合分子及其醫藥用途
TW202540200A (zh) 2023-12-01 2025-10-16 美商基利科學股份有限公司 抗fap-light融合蛋白及其用途

Family Cites Families (77)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
DE2808353C2 (de) 1977-04-18 1984-01-19 Hitachi Metals, Ltd., Tokyo Ohrring
US4816567A (en) 1983-04-08 1989-03-28 Genentech, Inc. Recombinant immunoglobin preparations
IL85035A0 (en) 1987-01-08 1988-06-30 Int Genetic Eng Polynucleotide molecule,a chimeric antibody with specificity for human b cell surface antigen,a process for the preparation and methods utilizing the same
FI903489A7 (fi) 1988-11-11 1990-07-10 Medical Res Council Yhden osan sisältävät ligandit, näitä ligandeja sisältävät reseptorit, menetelmiä niiden valmistamiseksi sekä ligandien ja reseptorien käytt ö
DE3920358A1 (de) 1989-06-22 1991-01-17 Behringwerke Ag Bispezifische und oligospezifische, mono- und oligovalente antikoerperkonstrukte, ihre herstellung und verwendung
US5959177A (en) 1989-10-27 1999-09-28 The Scripps Research Institute Transgenic plants expressing assembled secretory antibodies
GB9015198D0 (en) 1990-07-10 1990-08-29 Brien Caroline J O Binding substance
US5571894A (en) 1991-02-05 1996-11-05 Ciba-Geigy Corporation Recombinant antibodies specific for a growth factor receptor
EP0590058B1 (en) 1991-06-14 2003-11-26 Genentech, Inc. HUMANIZED Heregulin ANTIBODy
GB9114948D0 (en) 1991-07-11 1991-08-28 Pfizer Ltd Process for preparing sertraline intermediates
FI941572L (fi) 1991-10-07 1994-05-27 Oncologix Inc Anti-erbB-2-monoklonaalisten vasta-aineiden yhdistelmä ja käyttömenetelmä
CA2372813A1 (en) 1992-02-06 1993-08-19 L.L. Houston Biosynthetic binding protein for cancer marker
US5731168A (en) 1995-03-01 1998-03-24 Genentech, Inc. Method for making heteromultimeric polypeptides
US5869046A (en) 1995-04-14 1999-02-09 Genentech, Inc. Altered polypeptides with increased half-life
US6267958B1 (en) 1995-07-27 2001-07-31 Genentech, Inc. Protein formulation
GB9603256D0 (en) 1996-02-16 1996-04-17 Wellcome Found Antibodies
EP0979281B1 (en) 1997-05-02 2005-07-20 Genentech, Inc. A method for making multispecific antibodies having heteromultimeric and common components
US6171586B1 (en) 1997-06-13 2001-01-09 Genentech, Inc. Antibody formulation
JP2002506353A (ja) 1997-06-24 2002-02-26 ジェネンテック・インコーポレーテッド ガラクトシル化糖タンパク質の方法及び組成物
US6040498A (en) 1998-08-11 2000-03-21 North Caroline State University Genetically engineered duckweed
DE19742706B4 (de) 1997-09-26 2013-07-25 Pieris Proteolab Ag Lipocalinmuteine
CA2307166A1 (en) 1997-10-31 1999-05-14 Genentech, Inc. Methods and compositions comprising glycoprotein glycoforms
AUPP221098A0 (en) 1998-03-06 1998-04-02 Diatech Pty Ltd V-like domain binding molecules
JP4334141B2 (ja) 1998-04-20 2009-09-30 グリカート バイオテクノロジー アクチェンゲゼルシャフト 抗体依存性細胞傷害性を改善するための抗体のグリコシル化操作
US6818418B1 (en) 1998-12-10 2004-11-16 Compound Therapeutics, Inc. Protein scaffolds for antibody mimics and other binding proteins
US7115396B2 (en) 1998-12-10 2006-10-03 Compound Therapeutics, Inc. Protein scaffolds for antibody mimics and other binding proteins
US6737056B1 (en) 1999-01-15 2004-05-18 Genentech, Inc. Polypeptide variants with altered effector function
US7125978B1 (en) 1999-10-04 2006-10-24 Medicago Inc. Promoter for regulating expression of foreign genes
KR100797667B1 (ko) 1999-10-04 2008-01-23 메디카고 인코포레이티드 외래 유전자의 전사를 조절하는 방법
EP1332209B1 (en) 2000-09-08 2009-11-11 Universität Zürich Collections of repeat proteins comprising repeat modules
CN1294148C (zh) 2001-04-11 2007-01-10 中国科学院遗传与发育生物学研究所 环状单链三特异抗体
EP1423510A4 (en) 2001-08-03 2005-06-01 Glycart Biotechnology Ag ANTIBODY GLYCOSYLATION VARIANTS WITH INCREASED ANTIBODY-DEPENDENT CELLULAR CYTOTOXICITY
PL213948B1 (pl) 2001-10-25 2013-05-31 Genentech Inc Kompozycje zawierajace glikoproteine, czasteczka kwasu nukleinowego kodujaca te glikoproteine, komórka gospodarza, sposób wytwarzania glikoproteiny, kompozycja do zastosowania do leczenia, zastosowanie kompozycji i zestaw zawierajacy kompozycje
US20040093621A1 (en) 2001-12-25 2004-05-13 Kyowa Hakko Kogyo Co., Ltd Antibody composition which specifically binds to CD20
US7432063B2 (en) 2002-02-14 2008-10-07 Kalobios Pharmaceuticals, Inc. Methods for affinity maturation
US7871607B2 (en) 2003-03-05 2011-01-18 Halozyme, Inc. Soluble glycosaminoglycanases and methods of preparing and using soluble glycosaminoglycanases
US20060104968A1 (en) 2003-03-05 2006-05-18 Halozyme, Inc. Soluble glycosaminoglycanases and methods of preparing and using soluble glycosaminogly ycanases
RS20150135A1 (sr) 2003-05-30 2015-08-31 Genentech Inc. Tretman sa anti-vegf antitelima
CA2531238C (en) 2003-07-04 2015-02-24 Affibody Ab Polypeptides having binding affinity for her2
WO2005019255A1 (en) 2003-08-25 2005-03-03 Pieris Proteolab Ag Muteins of tear lipocalin
CN1326881C (zh) 2003-09-29 2007-07-18 中国人民解放军军事医学科学院基础医学研究所 一种三价双特异性抗体,其制备方法及用途
US7288638B2 (en) 2003-10-10 2007-10-30 Bristol-Myers Squibb Company Fully human antibodies against human 4-1BB
HUE038955T2 (hu) 2003-11-05 2018-12-28 Roche Glycart Ag Antigén-kötõ molekulák fokozott Fc receptor-kötõ affinitással és effektor funkcióval
BRPI0417302A (pt) 2003-12-05 2007-03-06 Compound Therapeutics Inc inibidores de receptores de fator de crescimento endotelial vascular do tipo 2
WO2005100402A1 (en) 2004-04-13 2005-10-27 F.Hoffmann-La Roche Ag Anti-p-selectin antibodies
TWI309240B (en) 2004-09-17 2009-05-01 Hoffmann La Roche Anti-ox40l antibodies
TR201808537T4 (tr) 2004-09-23 2018-07-23 Genentech Inc Sistein değiştirilmiş antikorlar ve konjugatlar.
JO3000B1 (ar) 2004-10-20 2016-09-05 Genentech Inc مركبات أجسام مضادة .
KR101374454B1 (ko) 2005-03-31 2014-03-17 추가이 세이야쿠 가부시키가이샤 회합제어에 의한 폴리펩티드 제조방법
JP5027804B2 (ja) 2005-05-26 2012-09-19 シアトル ジェネティクス,インコーポレーテッド ヒト化抗cd40抗体およびその使用方法
DK1999154T3 (da) 2006-03-24 2012-12-03 Merck Patent Gmbh Fremstillede heterodimere proteindomæner
WO2007147901A1 (en) 2006-06-22 2007-12-27 Novo Nordisk A/S Production of bispecific antibodies
EP1958957A1 (en) 2007-02-16 2008-08-20 NascaCell Technologies AG Polypeptide comprising a knottin protein moiety
US20090162359A1 (en) 2007-12-21 2009-06-25 Christian Klein Bivalent, bispecific antibodies
EP3663318A1 (en) 2008-01-07 2020-06-10 Amgen Inc. Method for making antibody fc-heterodimeric molecules using electrostatic steering effects
ES2579231T3 (es) 2008-01-15 2016-08-08 Abbvie Inc Vectores de expresión de mamíferos mejorados y usos de los mismos
PT2417156E (pt) 2009-04-07 2015-04-29 Roche Glycart Ag Anticorpos trivalentes, biespecíficos
US9067986B2 (en) 2009-04-27 2015-06-30 Oncomed Pharmaceuticals, Inc. Method for making heteromultimeric molecules
US20130089554A1 (en) 2009-12-29 2013-04-11 Emergent Product Development Seattle, Llc RON Binding Constructs and Methods of Use Thereof
TW201138821A (en) 2010-03-26 2011-11-16 Roche Glycart Ag Bispecific antibodies
WO2011143545A1 (en) 2010-05-14 2011-11-17 Rinat Neuroscience Corporation Heterodimeric proteins and methods for producing and purifying them
PE20171512A1 (es) * 2010-08-13 2017-10-20 Roche Glycart Ag Anticuerpos anti-fap
CN103429620B (zh) 2010-11-05 2018-03-06 酵活有限公司 在Fc结构域中具有突变的稳定异源二聚的抗体设计
LT2691417T (lt) 2011-03-29 2018-10-25 Roche Glycart Ag Antikūno fc variantai
WO2013006244A1 (en) * 2011-06-08 2013-01-10 Arizona Board Of Regents, A Body Corporate Of The State Of Arizona Acting For And On Behalf Of Arizona State University Bispecific monoclonal antibody therapeutics against west nile virus with improved cns penetration
EP2729488A4 (en) 2011-07-06 2015-01-14 Medimmune Llc PROCESS FOR PREPARING MULTIMANT POLYPEPTIDES
JP6038920B2 (ja) 2011-08-23 2016-12-07 ボード・オブ・リージエンツ,ザ・ユニバーシテイ・オブ・テキサス・システム 抗ox40抗体およびそれを使用する方法
US9527927B2 (en) 2011-12-20 2016-12-27 Medimmune, Llc Modified polypeptides for bispecific antibody scaffolds
WO2013157953A1 (en) 2012-04-20 2013-10-24 Merus B.V. Methods and means for the production of ig-like molecules
EP2948475A2 (en) 2013-01-23 2015-12-02 AbbVie Inc. Methods and compositions for modulating an immune response
MY206406A (en) 2015-10-02 2024-12-16 Hoffmann La Roche Bispecific antibodies specific for a costimulatory tnf receptor
PE20181349A1 (es) * 2015-10-07 2018-08-22 Hoffmann La Roche Anticuerpos biespecificos con tetravalencia para un receptor de fnt coestimulador
EP3443006B1 (en) * 2016-04-13 2023-08-02 Sanofi Trispecific and/or trivalent binding proteins
JP6675017B2 (ja) * 2016-05-02 2020-04-01 エフ.ホフマン−ラ ロシュ アーゲーF. Hoffmann−La Roche Aktiengesellschaft コントースボディ−単鎖標的結合物質
CA3047070A1 (en) * 2017-01-03 2018-07-12 F.Hoffmann-La Roche Ag Bispecific antigen binding molecules comprising anti-4-1bb clone 20h4.9
CN110402255B (zh) * 2017-04-04 2022-12-02 豪夫迈·罗氏有限公司 新颖的能够特异性结合cd40和fap的双特异性抗原结合分子
BR112020008031A2 (pt) 2017-11-01 2020-10-27 F. Hoffmann-La Roche Ag anticorpo multiespecíficos, método para a preparação do anticorpo multiespecífico, conjunto de ácidos nucleicos, vetor de expressão, célula hospedeira e composição farmacêutica

Also Published As

Publication number Publication date
RU2020117441A (ru) 2021-12-01
MA50505A (fr) 2020-09-09
IL272747A (en) 2020-04-30
EP3703821A2 (en) 2020-09-09
TW201922791A (zh) 2019-06-16
TWI829658B (zh) 2024-01-21
CA3076027A1 (en) 2019-05-09
US12227594B2 (en) 2025-02-18
CN111182944B (zh) 2022-11-22
PE20210844A1 (es) 2021-05-10
BR112020006443A2 (pt) 2020-09-29
MX2020004571A (es) 2020-08-24
WO2019086500A3 (en) 2019-08-29
MY205342A (en) 2024-10-16
IL272747B1 (en) 2024-12-01
JP2021500898A (ja) 2021-01-14
CR20200171A (es) 2020-06-14
SG11202002903XA (en) 2020-04-29
CN111182944A (zh) 2020-05-19
CL2020000662A1 (es) 2020-10-02
JP7098725B2 (ja) 2022-07-11
IL272747B2 (en) 2025-04-01
RU2020117441A3 (ko) 2022-04-01
WO2019086500A2 (en) 2019-05-09
ZA202001139B (en) 2021-03-31
AU2018357923A1 (en) 2020-03-05
US20210324108A1 (en) 2021-10-21

Similar Documents

Publication Publication Date Title
JP7098725B2 (ja) 二重特異性2+1コントースボディ
US12240911B2 (en) Bispecific antibodies specific for OX40
US20230227584A1 (en) Bispecific antibodies comprising a modified c-terminal crossfab fragment
US20220073646A1 (en) Bispecific antibodies with tetravalency for a costimulatory tnf receptor
JP7122311B2 (ja) 抗4-1bbクローン20h4.9を含む二重特異性抗原結合分子
US20200347115A1 (en) Novel tnf family ligand trimer-containing antigen binding molecules
JP6801006B2 (ja) Tnfファミリーリガンドトリマーとpd1結合部分とを含む抗原結合分子
JP7285076B2 (ja) Tnfファミリーリガンドトリマーとテネイシン結合部分とを含む抗原結合分子
US11453722B2 (en) Bispecific antigen binding molecule for a costimulatory TNF receptor
CN111741979A (zh) 包含4-1BBL的Her2靶向性抗原结合分子
CN110506059A (zh) 特异性结合pd1和lag3的双特异性抗体
RU2797305C2 (ru) Биспецифические 2+1 конторстела
US20250333542A1 (en) Interferon gamma variants and antigen binding molecules comprising these
HK40029815A (en) Bispecific 2+1 contorsbody
HK40029815B (en) Bispecific 2+1 contorsbody
HK40017762B (en) Bispecific antigen binding molecules comprising anti-4-1bb clone 20h4.9

Legal Events

Date Code Title Description
PA0105 International application

Patent event date: 20200424

Patent event code: PA01051R01D

Comment text: International Patent Application

PG1501 Laying open of application
A201 Request for examination
PA0201 Request for examination

Patent event code: PA02012R01D

Patent event date: 20211027

Comment text: Request for Examination of Application

E902 Notification of reason for refusal
PE0902 Notice of grounds for rejection

Comment text: Notification of reason for refusal

Patent event date: 20240329

Patent event code: PE09021S01D

E601 Decision to refuse application
PE0601 Decision on rejection of patent

Patent event date: 20241218

Comment text: Decision to Refuse Application

Patent event code: PE06012S01D