RU2238325C2 - Способ получения l-аминокислоты c использованием микроорганизма - Google Patents
Способ получения l-аминокислоты c использованием микроорганизма Download PDFInfo
- Publication number
- RU2238325C2 RU2238325C2 RU2001118542A RU2001118542A RU2238325C2 RU 2238325 C2 RU2238325 C2 RU 2238325C2 RU 2001118542 A RU2001118542 A RU 2001118542A RU 2001118542 A RU2001118542 A RU 2001118542A RU 2238325 C2 RU2238325 C2 RU 2238325C2
- Authority
- RU
- Russia
- Prior art keywords
- respiratory chain
- microorganism
- ndh
- amino acid
- producing
- Prior art date
Links
- 244000005700 microbiome Species 0.000 title claims abstract description 56
- 238000000034 method Methods 0.000 title claims abstract description 31
- 230000035806 respiratory chain Effects 0.000 claims abstract description 60
- 230000000694 effects Effects 0.000 claims abstract description 30
- 150000008575 L-amino acids Chemical class 0.000 claims abstract description 18
- 241000588722 Escherichia Species 0.000 claims abstract description 11
- 230000002950 deficient Effects 0.000 claims abstract description 11
- 230000002068 genetic effect Effects 0.000 claims abstract description 5
- 108090000623 proteins and genes Proteins 0.000 claims description 37
- 102000004190 Enzymes Human genes 0.000 claims description 32
- 108090000790 Enzymes Proteins 0.000 claims description 32
- 230000037361 pathway Effects 0.000 claims description 29
- 108050008072 Cytochrome c oxidase subunit IV Proteins 0.000 claims description 27
- 102000004316 Oxidoreductases Human genes 0.000 claims description 27
- 108090000854 Oxidoreductases Proteins 0.000 claims description 27
- 102000000634 Cytochrome c oxidase subunit IV Human genes 0.000 claims description 26
- 101710164022 ATP-dependent RNA helicase A Proteins 0.000 claims description 24
- 102100030088 ATP-dependent RNA helicase A Human genes 0.000 claims description 19
- 238000004519 manufacturing process Methods 0.000 claims description 19
- 241000894006 Bacteria Species 0.000 claims description 13
- 241000186031 Corynebacteriaceae Species 0.000 claims description 13
- 230000014509 gene expression Effects 0.000 claims description 8
- 230000001965 increasing effect Effects 0.000 claims description 7
- 101710161590 NAD(P)H-quinone oxidoreductase subunit I Proteins 0.000 claims description 4
- 241000186254 coryneform bacterium Species 0.000 claims 1
- 230000004048 modification Effects 0.000 claims 1
- 238000012986 modification Methods 0.000 claims 1
- 239000000126 substance Substances 0.000 abstract description 16
- 230000002708 enhancing effect Effects 0.000 abstract description 7
- 238000009825 accumulation Methods 0.000 abstract description 2
- 241000186216 Corynebacterium Species 0.000 abstract 1
- 150000001413 amino acids Chemical class 0.000 abstract 1
- 238000012258 culturing Methods 0.000 abstract 1
- 239000013612 plasmid Substances 0.000 description 47
- 101150106215 ndh gene Proteins 0.000 description 44
- 241000588724 Escherichia coli Species 0.000 description 28
- 239000013076 target substance Substances 0.000 description 27
- 239000002609 medium Substances 0.000 description 22
- 101150061301 ahpF gene Proteins 0.000 description 20
- 108020004414 DNA Proteins 0.000 description 17
- 239000013598 vector Substances 0.000 description 17
- KDXKERNSBIXSRK-YFKPBYRVSA-N L-lysine Chemical compound NCCCC[C@H](N)C(O)=O KDXKERNSBIXSRK-YFKPBYRVSA-N 0.000 description 16
- 210000004027 cell Anatomy 0.000 description 16
- AYFVYJQAPQTCCC-GBXIJSLDSA-N L-threonine Chemical compound C[C@@H](O)[C@H](N)C(O)=O AYFVYJQAPQTCCC-GBXIJSLDSA-N 0.000 description 14
- 239000013611 chromosomal DNA Substances 0.000 description 14
- 238000012546 transfer Methods 0.000 description 14
- COLNVLDHVKWLRT-QMMMGPOBSA-N L-phenylalanine Chemical compound OC(=O)[C@@H](N)CC1=CC=CC=C1 COLNVLDHVKWLRT-QMMMGPOBSA-N 0.000 description 13
- 241000186226 Corynebacterium glutamicum Species 0.000 description 11
- 239000012634 fragment Substances 0.000 description 11
- AZQWKYJCGOJGHM-UHFFFAOYSA-N 1,4-benzoquinone Chemical compound O=C1C=CC(=O)C=C1 AZQWKYJCGOJGHM-UHFFFAOYSA-N 0.000 description 10
- 108020004511 Recombinant DNA Proteins 0.000 description 10
- UCSJYZPVAKXKNQ-HZYVHMACSA-N streptomycin Chemical compound CN[C@H]1[C@H](O)[C@@H](O)[C@H](CO)O[C@H]1O[C@@H]1[C@](C=O)(O)[C@H](C)O[C@H]1O[C@@H]1[C@@H](NC(N)=N)[C@H](O)[C@@H](NC(N)=N)[C@H](O)[C@H]1O UCSJYZPVAKXKNQ-HZYVHMACSA-N 0.000 description 10
- 241001302584 Escherichia coli str. K-12 substr. W3110 Species 0.000 description 8
- 235000019766 L-Lysine Nutrition 0.000 description 8
- OUYCCCASQSFEME-QMMMGPOBSA-N L-tyrosine Chemical compound OC(=O)[C@@H](N)CC1=CC=C(O)C=C1 OUYCCCASQSFEME-QMMMGPOBSA-N 0.000 description 8
- 239000004472 Lysine Substances 0.000 description 8
- 239000004473 Threonine Substances 0.000 description 8
- 230000027756 respiratory electron transport chain Effects 0.000 description 8
- 229960002898 threonine Drugs 0.000 description 8
- 238000012217 deletion Methods 0.000 description 7
- 230000037430 deletion Effects 0.000 description 7
- 229960005190 phenylalanine Drugs 0.000 description 7
- FAPWRFPIFSIZLT-UHFFFAOYSA-M Sodium chloride Chemical compound [Na+].[Cl-] FAPWRFPIFSIZLT-UHFFFAOYSA-M 0.000 description 6
- 210000000349 chromosome Anatomy 0.000 description 6
- 230000001747 exhibiting effect Effects 0.000 description 6
- 230000010076 replication Effects 0.000 description 6
- 230000015572 biosynthetic process Effects 0.000 description 5
- 238000004146 energy storage Methods 0.000 description 5
- 238000005516 engineering process Methods 0.000 description 5
- 239000003550 marker Substances 0.000 description 5
- 230000035772 mutation Effects 0.000 description 5
- 229960005322 streptomycin Drugs 0.000 description 5
- QGZKDVFQNNGYKY-UHFFFAOYSA-N Ammonia Chemical compound N QGZKDVFQNNGYKY-UHFFFAOYSA-N 0.000 description 4
- NLXLAEXVIDQMFP-UHFFFAOYSA-N Ammonia chloride Chemical compound [NH4+].[Cl-] NLXLAEXVIDQMFP-UHFFFAOYSA-N 0.000 description 4
- IJGRMHOSHXDMSA-UHFFFAOYSA-N Atomic nitrogen Chemical compound N#N IJGRMHOSHXDMSA-UHFFFAOYSA-N 0.000 description 4
- WHUUTDBJXJRKMK-VKHMYHEASA-N L-glutamic acid Chemical compound OC(=O)[C@@H](N)CCC(O)=O WHUUTDBJXJRKMK-VKHMYHEASA-N 0.000 description 4
- ROHFNLRQFUQHCH-YFKPBYRVSA-N L-leucine Chemical compound CC(C)C[C@H](N)C(O)=O ROHFNLRQFUQHCH-YFKPBYRVSA-N 0.000 description 4
- KZSNJWFQEVHDMF-BYPYZUCNSA-N L-valine Chemical compound CC(C)[C@H](N)C(O)=O KZSNJWFQEVHDMF-BYPYZUCNSA-N 0.000 description 4
- CSNNHWWHGAXBCP-UHFFFAOYSA-L Magnesium sulfate Chemical compound [Mg+2].[O-][S+2]([O-])([O-])[O-] CSNNHWWHGAXBCP-UHFFFAOYSA-L 0.000 description 4
- 230000003321 amplification Effects 0.000 description 4
- 239000003242 anti bacterial agent Substances 0.000 description 4
- 229940088710 antibiotic agent Drugs 0.000 description 4
- 229940041514 candida albicans extract Drugs 0.000 description 4
- 230000007812 deficiency Effects 0.000 description 4
- 238000003199 nucleic acid amplification method Methods 0.000 description 4
- 108020004707 nucleic acids Proteins 0.000 description 4
- 150000007523 nucleic acids Chemical class 0.000 description 4
- 102000039446 nucleic acids Human genes 0.000 description 4
- 229960004441 tyrosine Drugs 0.000 description 4
- 239000012138 yeast extract Substances 0.000 description 4
- 244000063299 Bacillus subtilis Species 0.000 description 3
- 235000014469 Bacillus subtilis Nutrition 0.000 description 3
- 241001646716 Escherichia coli K-12 Species 0.000 description 3
- WQZGKKKJIJFFOK-GASJEMHNSA-N Glucose Natural products OC[C@H]1OC(O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-GASJEMHNSA-N 0.000 description 3
- 101100461234 Neurospora crassa (strain ATCC 24698 / 74-OR23-1A / CBS 708.71 / DSM 1257 / FGSC 987) ndh-1 gene Proteins 0.000 description 3
- KRKNYBCHXYNGOX-UHFFFAOYSA-N citric acid Chemical compound OC(=O)CC(O)(C(O)=O)CC(O)=O KRKNYBCHXYNGOX-UHFFFAOYSA-N 0.000 description 3
- 238000011161 development Methods 0.000 description 3
- 230000018109 developmental process Effects 0.000 description 3
- 239000008103 glucose Substances 0.000 description 3
- 230000006801 homologous recombination Effects 0.000 description 3
- 238000002744 homologous recombination Methods 0.000 description 3
- 239000000203 mixture Substances 0.000 description 3
- 230000006798 recombination Effects 0.000 description 3
- 238000005215 recombination Methods 0.000 description 3
- 210000002345 respiratory system Anatomy 0.000 description 3
- 108091008146 restriction endonucleases Proteins 0.000 description 3
- 239000011780 sodium chloride Substances 0.000 description 3
- ZKHQWZAMYRWXGA-KQYNXXCUSA-J ATP(4-) Chemical compound C1=NC=2C(N)=NC=NC=2N1[C@@H]1O[C@H](COP([O-])(=O)OP([O-])(=O)OP([O-])([O-])=O)[C@@H](O)[C@H]1O ZKHQWZAMYRWXGA-KQYNXXCUSA-J 0.000 description 2
- ZKHQWZAMYRWXGA-UHFFFAOYSA-N Adenosine triphosphate Natural products C1=NC=2C(N)=NC=NC=2N1C1OC(COP(O)(=O)OP(O)(=O)OP(O)(O)=O)C(O)C1O ZKHQWZAMYRWXGA-UHFFFAOYSA-N 0.000 description 2
- 239000002028 Biomass Substances 0.000 description 2
- VTYYLEPIZMXCLO-UHFFFAOYSA-L Calcium carbonate Chemical compound [Ca+2].[O-]C([O-])=O VTYYLEPIZMXCLO-UHFFFAOYSA-L 0.000 description 2
- UXVMQQNJUSDDNG-UHFFFAOYSA-L Calcium chloride Chemical compound [Cl-].[Cl-].[Ca+2] UXVMQQNJUSDDNG-UHFFFAOYSA-L 0.000 description 2
- OKTJSMMVPCPJKN-UHFFFAOYSA-N Carbon Chemical compound [C] OKTJSMMVPCPJKN-UHFFFAOYSA-N 0.000 description 2
- 108091026890 Coding region Proteins 0.000 description 2
- 108020005199 Dehydrogenases Proteins 0.000 description 2
- 206010059866 Drug resistance Diseases 0.000 description 2
- 102000015782 Electron Transport Complex III Human genes 0.000 description 2
- 108010024882 Electron Transport Complex III Proteins 0.000 description 2
- VZCYOOQTPOCHFL-OWOJBTEDSA-N Fumaric acid Chemical compound OC(=O)\C=C\C(O)=O VZCYOOQTPOCHFL-OWOJBTEDSA-N 0.000 description 2
- PEDCQBHIVMGVHV-UHFFFAOYSA-N Glycerine Chemical compound OCC(O)CO PEDCQBHIVMGVHV-UHFFFAOYSA-N 0.000 description 2
- AGPKZVBTJJNPAG-WHFBIAKZSA-N L-isoleucine Chemical compound CC[C@H](C)[C@H](N)C(O)=O AGPKZVBTJJNPAG-WHFBIAKZSA-N 0.000 description 2
- 229930182844 L-isoleucine Natural products 0.000 description 2
- 239000004395 L-leucine Substances 0.000 description 2
- 235000019454 L-leucine Nutrition 0.000 description 2
- GUBGYTABKSRVRQ-QKKXKWKRSA-N Lactose Natural products OC[C@H]1O[C@@H](O[C@H]2[C@H](O)[C@@H](O)C(O)O[C@@H]2CO)[C@H](O)[C@@H](O)[C@H]1O GUBGYTABKSRVRQ-QKKXKWKRSA-N 0.000 description 2
- 102000003960 Ligases Human genes 0.000 description 2
- 108090000364 Ligases Proteins 0.000 description 2
- 240000004808 Saccharomyces cerevisiae Species 0.000 description 2
- 239000004098 Tetracycline Substances 0.000 description 2
- ZSLZBFCDCINBPY-ZSJPKINUSA-N acetyl-CoA Chemical compound O[C@@H]1[C@H](OP(O)(O)=O)[C@@H](COP(O)(=O)OP(O)(=O)OCC(C)(C)[C@@H](O)C(=O)NCCC(=O)NCCSC(=O)C)O[C@H]1N1C2=NC=NC(N)=C2N=C1 ZSLZBFCDCINBPY-ZSJPKINUSA-N 0.000 description 2
- 239000013543 active substance Substances 0.000 description 2
- 235000019270 ammonium chloride Nutrition 0.000 description 2
- -1 bc1 complex Proteins 0.000 description 2
- 239000001110 calcium chloride Substances 0.000 description 2
- 229910001628 calcium chloride Inorganic materials 0.000 description 2
- 229910052799 carbon Inorganic materials 0.000 description 2
- 238000010367 cloning Methods 0.000 description 2
- 230000029087 digestion Effects 0.000 description 2
- 229940079593 drug Drugs 0.000 description 2
- 239000003814 drug Substances 0.000 description 2
- 238000000855 fermentation Methods 0.000 description 2
- 230000004151 fermentation Effects 0.000 description 2
- 229960002989 glutamic acid Drugs 0.000 description 2
- 239000003102 growth factor Substances 0.000 description 2
- 230000003834 intracellular effect Effects 0.000 description 2
- 229960000310 isoleucine Drugs 0.000 description 2
- 239000008101 lactose Substances 0.000 description 2
- 229960003136 leucine Drugs 0.000 description 2
- 229910052943 magnesium sulfate Inorganic materials 0.000 description 2
- 235000019341 magnesium sulphate Nutrition 0.000 description 2
- 229910052757 nitrogen Inorganic materials 0.000 description 2
- 230000001105 regulatory effect Effects 0.000 description 2
- 230000029058 respiratory gaseous exchange Effects 0.000 description 2
- 230000002269 spontaneous effect Effects 0.000 description 2
- 238000003860 storage Methods 0.000 description 2
- WPLOVIFNBMNBPD-ATHMIXSHSA-N subtilin Chemical compound CC1SCC(NC2=O)C(=O)NC(CC(N)=O)C(=O)NC(C(=O)NC(CCCCN)C(=O)NC(C(C)CC)C(=O)NC(=C)C(=O)NC(CCCCN)C(O)=O)CSC(C)C2NC(=O)C(CC(C)C)NC(=O)C1NC(=O)C(CCC(N)=O)NC(=O)C(CC(C)C)NC(=O)C(NC(=O)C1NC(=O)C(=C/C)/NC(=O)C(CCC(N)=O)NC(=O)C(CC(C)C)NC(=O)C(C)NC(=O)CNC(=O)C(NC(=O)C(NC(=O)C2NC(=O)CNC(=O)C3CCCN3C(=O)C(NC(=O)C3NC(=O)C(CC(C)C)NC(=O)C(=C)NC(=O)C(CCC(O)=O)NC(=O)C(NC(=O)C(CCCCN)NC(=O)C(N)CC=4C5=CC=CC=C5NC=4)CSC3)C(C)SC2)C(C)C)C(C)SC1)CC1=CC=CC=C1 WPLOVIFNBMNBPD-ATHMIXSHSA-N 0.000 description 2
- 238000003786 synthesis reaction Methods 0.000 description 2
- 229960002180 tetracycline Drugs 0.000 description 2
- 229930101283 tetracycline Natural products 0.000 description 2
- 235000019364 tetracycline Nutrition 0.000 description 2
- 150000003522 tetracyclines Chemical class 0.000 description 2
- LWIHDJKSTIGBAC-UHFFFAOYSA-K tripotassium phosphate Chemical compound [K+].[K+].[K+].[O-]P([O-])([O-])=O LWIHDJKSTIGBAC-UHFFFAOYSA-K 0.000 description 2
- 229960004295 valine Drugs 0.000 description 2
- 235000013343 vitamin Nutrition 0.000 description 2
- 239000011782 vitamin Substances 0.000 description 2
- 229940088594 vitamin Drugs 0.000 description 2
- 229930003231 vitamin Natural products 0.000 description 2
- XLYOFNOQVPJJNP-UHFFFAOYSA-N water Substances O XLYOFNOQVPJJNP-UHFFFAOYSA-N 0.000 description 2
- AUHDWARTFSKSAC-HEIFUQTGSA-N (2S,3R,4S,5R)-3,4-dihydroxy-5-(hydroxymethyl)-2-(6-oxo-1H-purin-9-yl)oxolane-2-carboxylic acid Chemical compound [C@]1([C@H](O)[C@H](O)[C@@H](CO)O1)(N1C=NC=2C(O)=NC=NC12)C(=O)O AUHDWARTFSKSAC-HEIFUQTGSA-N 0.000 description 1
- QDGAVODICPCDMU-UHFFFAOYSA-N 2-amino-3-[3-[bis(2-chloroethyl)amino]phenyl]propanoic acid Chemical compound OC(=O)C(N)CC1=CC=CC(N(CCCl)CCCl)=C1 QDGAVODICPCDMU-UHFFFAOYSA-N 0.000 description 1
- HYPYXGZDOYTYDR-HAJWAVTHSA-N 2-methyl-3-[(2e,6e,10e,14e)-3,7,11,15,19-pentamethylicosa-2,6,10,14,18-pentaenyl]naphthalene-1,4-dione Chemical compound C1=CC=C2C(=O)C(C/C=C(C)/CC/C=C(C)/CC/C=C(C)/CC/C=C(C)/CCC=C(C)C)=C(C)C(=O)C2=C1 HYPYXGZDOYTYDR-HAJWAVTHSA-N 0.000 description 1
- FWMNVWWHGCHHJJ-SKKKGAJSSA-N 4-amino-1-[(2r)-6-amino-2-[[(2r)-2-[[(2r)-2-[[(2r)-2-amino-3-phenylpropanoyl]amino]-3-phenylpropanoyl]amino]-4-methylpentanoyl]amino]hexanoyl]piperidine-4-carboxylic acid Chemical compound C([C@H](C(=O)N[C@H](CC(C)C)C(=O)N[C@H](CCCCN)C(=O)N1CCC(N)(CC1)C(O)=O)NC(=O)[C@H](N)CC=1C=CC=CC=1)C1=CC=CC=C1 FWMNVWWHGCHHJJ-SKKKGAJSSA-N 0.000 description 1
- 241000186361 Actinobacteria <class> Species 0.000 description 1
- 229920001817 Agar Polymers 0.000 description 1
- GUBGYTABKSRVRQ-XLOQQCSPSA-N Alpha-Lactose Chemical compound O[C@@H]1[C@@H](O)[C@@H](O)[C@@H](CO)O[C@H]1O[C@@H]1[C@@H](CO)O[C@H](O)[C@H](O)[C@H]1O GUBGYTABKSRVRQ-XLOQQCSPSA-N 0.000 description 1
- VHUUQVKOLVNVRT-UHFFFAOYSA-N Ammonium hydroxide Chemical compound [NH4+].[OH-] VHUUQVKOLVNVRT-UHFFFAOYSA-N 0.000 description 1
- 239000004254 Ammonium phosphate Substances 0.000 description 1
- 241000193830 Bacillus <bacterium> Species 0.000 description 1
- 101100427576 Caenorhabditis elegans ung-1 gene Proteins 0.000 description 1
- ACTIUHUUMQJHFO-UHFFFAOYSA-N Coenzym Q10 Natural products COC1=C(OC)C(=O)C(CC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)C)=C(C)C1=O ACTIUHUUMQJHFO-UHFFFAOYSA-N 0.000 description 1
- 241001517047 Corynebacterium acetoacidophilum Species 0.000 description 1
- 102000018832 Cytochromes Human genes 0.000 description 1
- 108010052832 Cytochromes Proteins 0.000 description 1
- FBPFZTCFMRRESA-FSIIMWSLSA-N D-Glucitol Natural products OC[C@H](O)[C@H](O)[C@@H](O)[C@H](O)CO FBPFZTCFMRRESA-FSIIMWSLSA-N 0.000 description 1
- FBPFZTCFMRRESA-JGWLITMVSA-N D-glucitol Chemical compound OC[C@H](O)[C@@H](O)[C@H](O)[C@H](O)CO FBPFZTCFMRRESA-JGWLITMVSA-N 0.000 description 1
- 230000004544 DNA amplification Effects 0.000 description 1
- MYMOFIZGZYHOMD-UHFFFAOYSA-N Dioxygen Chemical compound O=O MYMOFIZGZYHOMD-UHFFFAOYSA-N 0.000 description 1
- 241000701959 Escherichia virus Lambda Species 0.000 description 1
- 229930091371 Fructose Natural products 0.000 description 1
- RFSUNEUAIZKAJO-ARQDHWQXSA-N Fructose Chemical compound OC[C@H]1O[C@](O)(CO)[C@@H](O)[C@@H]1O RFSUNEUAIZKAJO-ARQDHWQXSA-N 0.000 description 1
- 239000005715 Fructose Substances 0.000 description 1
- 108700039691 Genetic Promoter Regions Proteins 0.000 description 1
- 244000068988 Glycine max Species 0.000 description 1
- 235000010469 Glycine max Nutrition 0.000 description 1
- GRSZFWQUAKGDAV-UHFFFAOYSA-N Inosinic acid Natural products OC1C(O)C(COP(O)(O)=O)OC1N1C(NC=NC2=O)=C2N=C1 GRSZFWQUAKGDAV-UHFFFAOYSA-N 0.000 description 1
- UKAUYVFTDYCKQA-VKHMYHEASA-N L-homoserine Chemical compound OC(=O)[C@@H](N)CCO UKAUYVFTDYCKQA-VKHMYHEASA-N 0.000 description 1
- 125000000769 L-threonyl group Chemical group [H]N([H])[C@]([H])(C(=O)[*])[C@](O[H])(C([H])([H])[H])[H] 0.000 description 1
- 241000270322 Lepidosauria Species 0.000 description 1
- WAEMQWOKJMHJLA-UHFFFAOYSA-N Manganese(2+) Chemical compound [Mn+2] WAEMQWOKJMHJLA-UHFFFAOYSA-N 0.000 description 1
- VZUNGTLZRAYYDE-UHFFFAOYSA-N N-methyl-N'-nitro-N-nitrosoguanidine Chemical compound O=NN(C)C(=N)N[N+]([O-])=O VZUNGTLZRAYYDE-UHFFFAOYSA-N 0.000 description 1
- 101100294913 Neurospora crassa (strain ATCC 24698 / 74-OR23-1A / CBS 708.71 / DSM 1257 / FGSC 987) ndh-2 gene Proteins 0.000 description 1
- IOVCWXUNBOPUCH-UHFFFAOYSA-N Nitrous acid Chemical compound ON=O IOVCWXUNBOPUCH-UHFFFAOYSA-N 0.000 description 1
- 241000235070 Saccharomyces Species 0.000 description 1
- 241000607720 Serratia Species 0.000 description 1
- 241000607715 Serratia marcescens Species 0.000 description 1
- 229920002472 Starch Polymers 0.000 description 1
- KDYFGRWQOYBRFD-UHFFFAOYSA-N Succinic acid Natural products OC(=O)CCC(O)=O KDYFGRWQOYBRFD-UHFFFAOYSA-N 0.000 description 1
- AYFVYJQAPQTCCC-UHFFFAOYSA-N Threonine Natural products CC(O)C(N)C(O)=O AYFVYJQAPQTCCC-UHFFFAOYSA-N 0.000 description 1
- 241000319304 [Brevibacterium] flavum Species 0.000 description 1
- 239000002253 acid Substances 0.000 description 1
- 230000002378 acidificating effect Effects 0.000 description 1
- 239000008272 agar Substances 0.000 description 1
- 150000001298 alcohols Chemical class 0.000 description 1
- GZCGUPFRVQAUEE-SLPGGIOYSA-N aldehydo-D-glucose Chemical compound OC[C@@H](O)[C@@H](O)[C@H](O)[C@@H](O)C=O GZCGUPFRVQAUEE-SLPGGIOYSA-N 0.000 description 1
- 125000001931 aliphatic group Chemical group 0.000 description 1
- WQZGKKKJIJFFOK-PHYPRBDBSA-N alpha-D-galactose Chemical compound OC[C@H]1O[C@H](O)[C@H](O)[C@@H](O)[C@H]1O WQZGKKKJIJFFOK-PHYPRBDBSA-N 0.000 description 1
- 229910021529 ammonia Inorganic materials 0.000 description 1
- 229910000148 ammonium phosphate Inorganic materials 0.000 description 1
- 235000019289 ammonium phosphates Nutrition 0.000 description 1
- 150000003863 ammonium salts Chemical class 0.000 description 1
- BFNBIHQBYMNNAN-UHFFFAOYSA-N ammonium sulfate Chemical compound N.N.OS(O)(=O)=O BFNBIHQBYMNNAN-UHFFFAOYSA-N 0.000 description 1
- 229910052921 ammonium sulfate Inorganic materials 0.000 description 1
- 235000011130 ammonium sulphate Nutrition 0.000 description 1
- 229960000723 ampicillin Drugs 0.000 description 1
- AVKUERGKIZMTKX-NJBDSQKTSA-N ampicillin Chemical compound C1([C@@H](N)C(=O)N[C@H]2[C@H]3SC([C@@H](N3C2=O)C(O)=O)(C)C)=CC=CC=C1 AVKUERGKIZMTKX-NJBDSQKTSA-N 0.000 description 1
- 230000003698 anagen phase Effects 0.000 description 1
- WQZGKKKJIJFFOK-VFUOTHLCSA-N beta-D-glucose Chemical compound OC[C@H]1O[C@@H](O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-VFUOTHLCSA-N 0.000 description 1
- KDYFGRWQOYBRFD-NUQCWPJISA-N butanedioic acid Chemical compound O[14C](=O)CC[14C](O)=O KDYFGRWQOYBRFD-NUQCWPJISA-N 0.000 description 1
- 235000010216 calcium carbonate Nutrition 0.000 description 1
- 229910000019 calcium carbonate Inorganic materials 0.000 description 1
- 150000001720 carbohydrates Chemical class 0.000 description 1
- 235000014633 carbohydrates Nutrition 0.000 description 1
- 210000000170 cell membrane Anatomy 0.000 description 1
- 230000008859 change Effects 0.000 description 1
- 238000006243 chemical reaction Methods 0.000 description 1
- 230000002759 chromosomal effect Effects 0.000 description 1
- 235000017471 coenzyme Q10 Nutrition 0.000 description 1
- ACTIUHUUMQJHFO-UPTCCGCDSA-N coenzyme Q10 Chemical compound COC1=C(OC)C(=O)C(C\C=C(/C)CC\C=C(/C)CC\C=C(/C)CC\C=C(/C)CC\C=C(/C)CC\C=C(/C)CC\C=C(/C)CC\C=C(/C)CC\C=C(/C)CCC=C(C)C)=C(C)C1=O ACTIUHUUMQJHFO-UPTCCGCDSA-N 0.000 description 1
- 150000001875 compounds Chemical class 0.000 description 1
- 230000021615 conjugation Effects 0.000 description 1
- 108010077128 cytochrome o oxidase Proteins 0.000 description 1
- MNNHAPBLZZVQHP-UHFFFAOYSA-N diammonium hydrogen phosphate Chemical compound [NH4+].[NH4+].OP([O-])([O-])=O MNNHAPBLZZVQHP-UHFFFAOYSA-N 0.000 description 1
- PXEDJBXQKAGXNJ-QTNFYWBSSA-L disodium L-glutamate Chemical compound [Na+].[Na+].[O-]C(=O)[C@@H](N)CCC([O-])=O PXEDJBXQKAGXNJ-QTNFYWBSSA-L 0.000 description 1
- BNIILDVGGAEEIG-UHFFFAOYSA-L disodium hydrogen phosphate Chemical compound [Na+].[Na+].OP([O-])([O-])=O BNIILDVGGAEEIG-UHFFFAOYSA-L 0.000 description 1
- 229910000397 disodium phosphate Inorganic materials 0.000 description 1
- 235000019800 disodium phosphate Nutrition 0.000 description 1
- 230000002255 enzymatic effect Effects 0.000 description 1
- 239000000284 extract Substances 0.000 description 1
- 239000001530 fumaric acid Substances 0.000 description 1
- 230000004927 fusion Effects 0.000 description 1
- 229930182830 galactose Natural products 0.000 description 1
- 235000011187 glycerol Nutrition 0.000 description 1
- 230000034659 glycolysis Effects 0.000 description 1
- 239000001963 growth medium Substances 0.000 description 1
- 150000004688 heptahydrates Chemical class 0.000 description 1
- 238000004128 high performance liquid chromatography Methods 0.000 description 1
- 229910001410 inorganic ion Inorganic materials 0.000 description 1
- 239000004245 inosinic acid Substances 0.000 description 1
- 235000013902 inosinic acid Nutrition 0.000 description 1
- 229940028843 inosinic acid Drugs 0.000 description 1
- 238000005342 ion exchange Methods 0.000 description 1
- XEEYBQQBJWHFJM-UHFFFAOYSA-N iron Substances [Fe] XEEYBQQBJWHFJM-UHFFFAOYSA-N 0.000 description 1
- 229910052742 iron Inorganic materials 0.000 description 1
- 239000007788 liquid Substances 0.000 description 1
- 238000009630 liquid culture Methods 0.000 description 1
- 229910001437 manganese ion Inorganic materials 0.000 description 1
- 230000002503 metabolic effect Effects 0.000 description 1
- 238000012269 metabolic engineering Methods 0.000 description 1
- 230000000813 microbial effect Effects 0.000 description 1
- 229910000402 monopotassium phosphate Inorganic materials 0.000 description 1
- 235000019796 monopotassium phosphate Nutrition 0.000 description 1
- 235000013923 monosodium glutamate Nutrition 0.000 description 1
- 238000002703 mutagenesis Methods 0.000 description 1
- 231100000350 mutagenesis Toxicity 0.000 description 1
- 231100000219 mutagenic Toxicity 0.000 description 1
- 239000003471 mutagenic agent Substances 0.000 description 1
- 230000003505 mutagenic effect Effects 0.000 description 1
- 101150116541 nadB gene Proteins 0.000 description 1
- 235000015097 nutrients Nutrition 0.000 description 1
- 150000007524 organic acids Chemical class 0.000 description 1
- 235000005985 organic acids Nutrition 0.000 description 1
- 125000001477 organic nitrogen group Chemical group 0.000 description 1
- 238000007254 oxidation reaction Methods 0.000 description 1
- 230000035699 permeability Effects 0.000 description 1
- COLNVLDHVKWLRT-UHFFFAOYSA-N phenylalanine Natural products OC(=O)C(N)CC1=CC=CC=C1 COLNVLDHVKWLRT-UHFFFAOYSA-N 0.000 description 1
- PJNZPQUBCPKICU-UHFFFAOYSA-N phosphoric acid;potassium Chemical compound [K].OP(O)(O)=O PJNZPQUBCPKICU-UHFFFAOYSA-N 0.000 description 1
- 229910000160 potassium phosphate Inorganic materials 0.000 description 1
- 235000011009 potassium phosphates Nutrition 0.000 description 1
- 238000001556 precipitation Methods 0.000 description 1
- 238000002360 preparation method Methods 0.000 description 1
- 238000012545 processing Methods 0.000 description 1
- 235000018102 proteins Nutrition 0.000 description 1
- 102000004169 proteins and genes Human genes 0.000 description 1
- 210000001938 protoplast Anatomy 0.000 description 1
- 238000000746 purification Methods 0.000 description 1
- ADTDNFFHPRZSOT-PVFUSPOPSA-N ram-330 Chemical compound C([C@H]1N(CC2)C)C3=CC=C(OC)C(OC)=C3[C@]32[C@@]1(O)CC[C@@H](OC(=O)OCC)C3 ADTDNFFHPRZSOT-PVFUSPOPSA-N 0.000 description 1
- NPCOQXAVBJJZBQ-UHFFFAOYSA-N reduced coenzyme Q9 Natural products COC1=C(O)C(C)=C(CC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)CCC=C(C)C)C(O)=C1OC NPCOQXAVBJJZBQ-UHFFFAOYSA-N 0.000 description 1
- 230000001172 regenerating effect Effects 0.000 description 1
- 230000003362 replicative effect Effects 0.000 description 1
- 230000004044 response Effects 0.000 description 1
- 239000013605 shuttle vector Substances 0.000 description 1
- 239000001509 sodium citrate Substances 0.000 description 1
- NLJMYIDDQXHKNR-UHFFFAOYSA-K sodium citrate Chemical compound O.O.[Na+].[Na+].[Na+].[O-]C(=O)CC(O)(CC([O-])=O)C([O-])=O NLJMYIDDQXHKNR-UHFFFAOYSA-K 0.000 description 1
- 229940073490 sodium glutamate Drugs 0.000 description 1
- 239000000600 sorbitol Substances 0.000 description 1
- 241000894007 species Species 0.000 description 1
- 235000019698 starch Nutrition 0.000 description 1
- 239000008107 starch Substances 0.000 description 1
- 238000003756 stirring Methods 0.000 description 1
- 238000005728 strengthening Methods 0.000 description 1
- 238000006467 substitution reaction Methods 0.000 description 1
- 235000000346 sugar Nutrition 0.000 description 1
- 150000008163 sugars Chemical class 0.000 description 1
- JZRWCGZRTZMZEH-UHFFFAOYSA-N thiamine Chemical compound CC1=C(CCO)SC=[N+]1CC1=CN=C(C)N=C1N JZRWCGZRTZMZEH-UHFFFAOYSA-N 0.000 description 1
- 229940097022 thiamine 100 mg Drugs 0.000 description 1
- 229960000344 thiamine hydrochloride Drugs 0.000 description 1
- 235000019190 thiamine hydrochloride Nutrition 0.000 description 1
- 239000011747 thiamine hydrochloride Substances 0.000 description 1
- DPJRMOMPQZCRJU-UHFFFAOYSA-M thiamine hydrochloride Chemical compound Cl.[Cl-].CC1=C(CCO)SC=[N+]1CC1=CN=C(C)N=C1N DPJRMOMPQZCRJU-UHFFFAOYSA-M 0.000 description 1
- VZCYOOQTPOCHFL-UHFFFAOYSA-N trans-butenedioic acid Natural products OC(=O)C=CC(O)=O VZCYOOQTPOCHFL-UHFFFAOYSA-N 0.000 description 1
- 230000026683 transduction Effects 0.000 description 1
- 238000010361 transduction Methods 0.000 description 1
- 230000009466 transformation Effects 0.000 description 1
- 238000011426 transformation method Methods 0.000 description 1
- 230000001131 transforming effect Effects 0.000 description 1
- 230000004102 tricarboxylic acid cycle Effects 0.000 description 1
- 108010013280 ubiquinol oxidase Proteins 0.000 description 1
- 229940035936 ubiquinone Drugs 0.000 description 1
- 235000019143 vitamin K2 Nutrition 0.000 description 1
- 239000011728 vitamin K2 Substances 0.000 description 1
- 229940041603 vitamin k 3 Drugs 0.000 description 1
Images

Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12P—FERMENTATION OR ENZYME-USING PROCESSES TO SYNTHESISE A DESIRED CHEMICAL COMPOUND OR COMPOSITION OR TO SEPARATE OPTICAL ISOMERS FROM A RACEMIC MIXTURE
- C12P1/00—Preparation of compounds or compositions, not provided for in groups C12P3/00 - C12P39/00, by using microorganisms or enzymes
- C12P1/04—Preparation of compounds or compositions, not provided for in groups C12P3/00 - C12P39/00, by using microorganisms or enzymes by using bacteria
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12P—FERMENTATION OR ENZYME-USING PROCESSES TO SYNTHESISE A DESIRED CHEMICAL COMPOUND OR COMPOSITION OR TO SEPARATE OPTICAL ISOMERS FROM A RACEMIC MIXTURE
- C12P13/00—Preparation of nitrogen-containing organic compounds
- C12P13/04—Alpha- or beta- amino acids
- C12P13/22—Tryptophan; Tyrosine; Phenylalanine; 3,4-Dihydroxyphenylalanine
- C12P13/222—Phenylalanine
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/0004—Oxidoreductases (1.)
- C12N9/0012—Oxidoreductases (1.) acting on nitrogen containing compounds as donors (1.4, 1.5, 1.6, 1.7)
- C12N9/0036—Oxidoreductases (1.) acting on nitrogen containing compounds as donors (1.4, 1.5, 1.6, 1.7) acting on NADH or NADPH (1.6)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/0004—Oxidoreductases (1.)
- C12N9/0012—Oxidoreductases (1.) acting on nitrogen containing compounds as donors (1.4, 1.5, 1.6, 1.7)
- C12N9/0036—Oxidoreductases (1.) acting on nitrogen containing compounds as donors (1.4, 1.5, 1.6, 1.7) acting on NADH or NADPH (1.6)
- C12N9/0038—Oxidoreductases (1.) acting on nitrogen containing compounds as donors (1.4, 1.5, 1.6, 1.7) acting on NADH or NADPH (1.6) with a heme protein as acceptor (1.6.2)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12P—FERMENTATION OR ENZYME-USING PROCESSES TO SYNTHESISE A DESIRED CHEMICAL COMPOUND OR COMPOSITION OR TO SEPARATE OPTICAL ISOMERS FROM A RACEMIC MIXTURE
- C12P13/00—Preparation of nitrogen-containing organic compounds
- C12P13/04—Alpha- or beta- amino acids
- C12P13/08—Lysine; Diaminopimelic acid; Threonine; Valine
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12P—FERMENTATION OR ENZYME-USING PROCESSES TO SYNTHESISE A DESIRED CHEMICAL COMPOUND OR COMPOSITION OR TO SEPARATE OPTICAL ISOMERS FROM A RACEMIC MIXTURE
- C12P13/00—Preparation of nitrogen-containing organic compounds
- C12P13/04—Alpha- or beta- amino acids
- C12P13/22—Tryptophan; Tyrosine; Phenylalanine; 3,4-Dihydroxyphenylalanine
Landscapes
- Chemical & Material Sciences (AREA)
- Organic Chemistry (AREA)
- Life Sciences & Earth Sciences (AREA)
- Zoology (AREA)
- Engineering & Computer Science (AREA)
- Wood Science & Technology (AREA)
- Health & Medical Sciences (AREA)
- Genetics & Genomics (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Microbiology (AREA)
- Biochemistry (AREA)
- General Engineering & Computer Science (AREA)
- General Health & Medical Sciences (AREA)
- Biotechnology (AREA)
- General Chemical & Material Sciences (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Medicinal Chemistry (AREA)
- Molecular Biology (AREA)
- Biomedical Technology (AREA)
- Mycology (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Enzymes And Modification Thereof (AREA)
- Medicines Containing Material From Animals Or Micro-Organisms (AREA)
- Organic Low-Molecular-Weight Compounds And Preparation Thereof (AREA)
Abstract
Изобретение относится к биотехнологии и представляет собой способ получения L-аминокислоты с использованием микроорганизма, принадлежащего к роду Escherichia или коринеформной бактерии. Данный способ включает выращивание указанного микроорганизма в среде для продуцирования и накопление в среде и сбор накопленной аминокислоты. При этом микроорганизм создан из родительского штамма, имеющего путь дыхательной цепи с высоким энергетическим выходом и путь дыхательной цепи с низким энергетическим выходом в качестве путей дыхательной цепи, и этот микроорганизм представляет собой мутантный штамм или штамм генетического рекомбинанта, имеющего одну или обе из следующих характеристик: путь дыхательной цепи с высоким энергетическим выходом усилен; путь дыхательной цепи с низким энергетическим выходом является дефицитным. Данный способ позволяет увеличить выход L-аминокислоты. 7 з.п. ф-лы, 5 табл., 2 ил.
Description
Область техники
Настоящее изобретение относится к способу получения вещества с использованием микроорганизма. В настоящем изобретении микроорганизм обычно выбирают из бактерий, принадлежащих к роду Escherichia, или коринеформных бактерий, которые традиционно используют для производства веществ. Получаемое вещество может быть выбрано из веществ, обычно получаемых с использованием микроорганизмов, например L-аминокислот, нуклеиновых кислот, антибиотиков, витаминов, факторов роста, физиологически активных веществ и т.д. Настоящее изобретение раскрывает средства улучшения продуктивности по конечным целевым веществам в способах получения веществ с использованием микроорганизмов.
Описание близкой области техники
Многие организмы накапливают энергию, необходимую для жизнедеятельности, за счет дыхания. При дыхании микроорганизмов различные ферментные комплексы обычно функционируют соответственно видам или среде развития, и эффективность накопления энергии также меняется значительно. Углеводы, белки и алифатические кислоты преобразуются в ацетил-КоА в результате гликолиза, β -окисления и т.д. и подвергаются катаболизму в цикле лимонной кислоты. Энергия, сохраненная в этом случае в форме HAD.H, используется для "выбрасывания" протона из микробных клеток при содействии HAD.H-дегидрогеназы (NDH) и следующей системы электронного переноса, включающей оксидоредуктазы, и посредством чего образуется градиент концентрации протонов между внутренней стороной и внешней стороной цитоплазматической мембраны. Этот градиент концентрации протонов используется в качестве движущей силы синтеза аденозинтрифосфата (АТФ). В это же время существует путь, проявляющий высокую способность к протонному выбору, и путь, проявляющий низкую способность к протонному выбору, наряду с путями электронного переноса, зависящими от комбинации NDH и оксидоредуктаз. Считают, что путь с высокой способностью к протонному выбору проявляет высокий энергетический выход, а путь с низкой способностью к протонному выбору показывает низкий энергетический выход. Следовательно, один вид микроорганизма одновременно содержит множество путей электронного переноса в дыхательной цепи параллельно, и эти пути включают пути с высоким энергетическим выходом и низким энергетическим выходом.
Существует два вида NDH и два вида концевых оксидаз в дыхательной цепи Escherichia coli в аэробных условиях. То есть для NDH известны NDH-1 (кодируемая nuo-опероном) высокого энергетического выхода и NDH-II (кодируемая ndh-опероном) низкого энергетического выхода. Кроме того, что касается концевой оксидазы, то известны цитохромоксидаза bo (кодируемая cyoABCD-опероном), отнесенная к SохМ типу (Castresana, J., Saraste, M., Trends in Biochem. Sci., 20, 443-448, 1995) и проявляющая высокий энергетический выход, и цитохром bd-оксидаза (кодируемая cydAB-опероном), проявляющая низкий энергетический выход. Хотя известно, что экспрессируемые количества этих ферментов дыхательной цепи меняются в ответ на среду развития (Minagawa et al., The Journal of Biological Chemistry, 265:11198-11203, 1990; Tseng et al., Journal of Bacteriology, 178:1094-1098, 1996; Green et al., Molecular Microbiology, 12:433-444, 1994; Bongaerts et al., Molecular Microbiology, 16:521-534, 1995, все еще существует много неизвестных моментов относительно физиологического значения особенностей их экспрессии.
Кроме того, в Corynebacterium glutamicum существует комплекс цитохром bc1 и подтверждено наличие, по меньшей мере, двух типов концевых оксидаз, SохМ-оксидазы и цитохромоксидазы bd (The Second Symposium Concerning Metabolic Engineering, Lecture Abstracts, 1999). Это показывает, что путь электронного переноса от хинонового пула к молекуле кислорода включает два типа пути, путь, использующий комплекс цитохром bc1 и SoxM-оксидазу, и путь, использующий только цитохромоксидазы bd. Считают, что первый представляет собой путь электронного переноса высокого энергетического выхода, в котором число протонного переноса для переноса одного электрона является высоким, а последний представляет собой путь, в котором число протонного переноса для переноса одного электрона является низким.
Что касается концевой оксидазы Е.coli, то если сравнивать урожай биомассы в аэробной культуре мутантного штамма, имеющего только цитохромоксидазу bo, мутантного штамма, имеющего только цитохромоксидазу bd, и исходного штамма, имеющего обе оксидазы, урожай биомассы будет самым низким в мутантном штамме, имеющем только цитохромоксидазу bd, и это зависит от вида и эффективности энергонакопления концевой оксидазы (Annual Meeting of the Society for fermentation and Bioengineering Japan, 1995, Lecture Abstracts, №357).
Кроме того, описан энергетический выход мутантов с дефицитом некоторых ферментов дыхательной цепи (Calhoun et al., Journal of Bacteriology, 175:3020-3925, 1993).
Однако отсутствуют указания относительно изменения энергетического выхода путем амплификации гена дыхательной цепи, обеспечивающего высокую эффективность, такого как ген для NDH-I и SохМ-оксидазы, и даже не известны попытки использовать ее для получения веществ. Более того, для получения веществ не были предприняты попытки использовать делецию ферментов дыхательного пути низкой эффективности, таких как NDH-II и цито-хромоксидаза bd.
Сущность изобретения
В живых организмах для биосинтеза веществ, таких как L-аминокислоты и нуклеиновые кислоты, требуется энергия. Большая часть энергии, используемой в дальнейшем, заключается в восстанавливающей способности HAD.H, HADФ.H и т.д. и энергии, сохраненной в виде АТОФ. Таким образом, заявители настоящего изобретения предположили, что если в способе производства целевых веществ с использованием микроорганизмов запас энергии, используемый при продуцировании целевых веществ, был увеличен, продуктивность по целевым веществам будет улучшена. Исходя из этой концепции, объектом настоящего изобретения является создание микроорганизма, показывающего улучшенный энергетический выход, и разработка способа получения целевого вещества путем его использования.
Заявители настоящего изобретения заключили, что микроорганизм, имеющий повышенный запас энергии, мог бы быть создан путем усиления пути дыхательной цепи, проявляющего высокую эффективность энергонакопления, или путем придания дефицитности пути дыхательной цепи, проявляющего низкую эффективность энергонакопления. Более конкретно, что касается Е.coli, то штаммы, которые, как считают, имеют улучшенный энергетический выход, получены путем амплификации гена, кодирующего цитохромоксидазу bо как фермента дыхательной цепи с высоким энергетическим выходом, или путем делеции гена, кодирующего NDH-II как фермента дыхательной цепи с низким энергетическим выходом. Затем с их использованием осуществили получение L-аминокислоты и установили, что продуктивность по L-аминокислоте улучшается в штаммах, энергетический выход которых был улучшен. Следовательно, реализуется настоящее изобретение.
То есть, настоящее изобретение предлагает следующее.
(1) Способ получения целевого вещества с использованием микроорганизма, включающий выращивание микроорганизма в среде с целью продуцирования и накопления целевого вещества, где микроорганизм создан из родительского штамма микроорганизма, имеющей в качестве путей дыхательной цепи путь дыхательной цепи с высоким энергетическим выходом и путь дыхательной цепи с низким энергетическим выходом, и этот микроорганизм представляет собой мутантный штамм или штаммы генетического рекомбинанта, имеющий или одну, или обе из следующих характеристик:
(А) путь дыхательной цепи с высоким энергетическим выходом усилен,
(Б) путь дыхательной цепи с низким энергетическим выходом является дефицитным.
(2) Способ получения целевого вещества в соответствии с пунктом (1), где путь дыхательной цепи с высоким энергетическим выходом усилен путем увеличения копийности гена, кодирующего фермент, вовлеченный в дыхательную цепь, или модификации регулирующий экспрессию последовательности гена.
(3) Способ получения целевого вещества в соответствии с пунктами (1) или (2), где путь дыхательной цепи с низким энергетическим выходом сделан дефицитным путем разрушения гена, кодирующего фермент, вовлеченный в дыхательную цепь.
(4) Способ получения целевого вещества в соответствии с любым из пунктов (1)-(3), где ферменты дыхательной цепи с высоким энергетическим выходом включают SохМ-оксидазу, bc1-комплекс, NDH-1 или два, или три вида из них.
(5) Способ получения целевого вещества в соответствии с любым из пунктов (1)-(4), где ферменты дыхательной цепи с низким энергетическим выходом включают цитохромоксидазу bd, NDH-II или оба из них.
(6) Способ получения целевого вещества в соответствии с любым из пунктов (1)-(5), где в микроорганизме активность SoxM-оксидазы усилена, а NDH-II сделана дефицитной.
(7) Способ получения целевого вещества в соответствии с любым из пунктов (1)-(6), где SoxM-оксидаза представляет собой цитохромоксидазу bо.
(8) Способ получения целевого вещества в соответствии с любым из пунктов (1)-(7), где микроорганизм представляет собой бактерии, принадлежащие роду Escherichia, или коринеформные бактерии.
(9) Способ получения целевого вещества в соответствии с любым из пунктов (1)-(8), где целевое вещество представляет собой L-аминокислоту или нуклеиновую кислоту.
В соответствии с настоящим изобретением в способе получения целевого вещества с использованием микроорганизма, включающем выращивание микроорганизма в среде с целью получения и накопления целевого вещества в среде и сбор целевого вещества, продуктивность по целевому веществу может быть улучшена на основе принципов, отличных от обычной стратегии.
Краткое описание чертежей
На фиг.1 представлено создание плазмиды pTS-Δ ndh для получения линии с разрушенным геном для NDH-II.
На фиг.2 показано создание плазмиды pMAN997.
Подробное описание изобретения
Далее настоящее изобретение объяснено более подробно.
Вещество, получаемое способом получения настоящего изобретения, особенно не ограничено пока оно представляет собой вещество, которое может быть продуцировано микроорганизмом. Примерами таких веществ являются различные L-аминокислоты, такие как L-треонин, L-лизин, L-глутаминовая кислота, L-лейцин, L-изолейцин, L-валин и L-фенилаланин; нуклеиновые кислоты, такие как гуаниловая кислота и инозиновая кислота; витамины; антибиотики; факторы роста; физиологически активные вещества и т.д.
Микроорганизм, используемый для настоящего изобретения, представляет собой микроорганизм, обладающий способностью продуцировать целевое вещество, которое указано выше, и созданный из родительского штамма микроорганизма, имеющего в качестве путей дыхательной цепи путь дыхательной цепи с высоким энергетическим выходом и путь дыхательной цепи с низким энергетическим выходом и имеющий или одну, или обе из следующих характеристик:
(А) путь дыхательной цепи с высоким энергетическим выходом усилен,
(Б) путь дыхательной цепи с низким энергетическим выходом является дефицитным.
В общем случае микроорганизмы, включая Е.coli и коринеформные бактерии, одновременно содержат множество путей электронного переноса дыхательной цепи параллельно, и эти пути включают пути с высоким числом протонного переноса и пути с низким числом протонного переноса на один электрон. В Е.coli, например, что касается донора электрона HAD.H, то существуют NDHI и NDHII в качестве HAD.H-дегидрогеназ, которые катализируют протонный перенос от HAD.H к хиноновому пулу. Из них NDHI проявляет высокий энергетический выход, а NDHII проявляет низкий энергетический выход. То есть NDHII имеет молекулярное число протонов, которое может быть выделено с одним электроном (число протонного переноса), равное 0, тогда как число протонного переноса для NDHI, как считают, равно 2.
В настоящем изобретении такой путь, показывающий высокое число протонного переноса на один электрон, которое описано выше, например путь дыхательной цепи с высоким энергетическим выходом, усилен, а путь дыхательной цепи с низким энергетическим выходом сделан дефицитным. Путь дыхательной цепи с высоким энергетическим выходом может быть усилен путем усиления активности фермента дыхательной цепи, вовлеченного в путь дыхательной цепи. Путь дыхательной цепи с низким энергетическим выходом может быть сделан дефицитным за счет уменьшения или исключения активности фермента дыхательной цепи, вовлеченного в этот путь дыхательной цепи.
Фермент дыхательной цепи, вовлеченный в путь дыхательной цепи, не имеет особых ограничений пока он представляет собой фермент, составляющий путь дыхательной цепи. Конкретно примерами таких ферментов являются дегидрогеназы, которые катализируют электронный перенос от донора электрона к хиноновому пулу, такому как убихинон, диметилменахинон и менахинон, и оксидазы, которые катализируют электронный перенос от хинонового пула к донору электрона.
Оксидазы, которые катализируют реакцию получения молекулы воды путем электронного переноса от хинонового пула, классифицированы как SoxM-тип (bo-тип) и bd-тип.Число протонного переноса bo-типа равно 2, тогда как число протонного переноса bd-типа равно 1. Следовательно, bo-тип проявляет более высокий энергетический выход.
В настоящем изобретении определения “высокий” и “низкий”, используемые для энергетического выхода, не применяются в абсолютном значении, а приняты для обозначения относительных понятий, описанных выше.
Средства усиления активности фермента дыхательной цепи с высоким энергетическим выходом и средства снижения или исключения активности фермента дыхательного пути с низким энергетическим выходом будут объяснены ниже.
Для того чтобы усилить активность фермента дыхательной цепи с высоким энергетическим выходом, например, рекомбинантная ДНК может быть получена путем лигирования фрагмента гена, кодирующего фермент, с вектором, функционирующим в клетке микроорганизма, предпочтительно с мультикопийным вектором, и введена в микроорганизм для трансформации клетки. Копийность гена, кодирующего фермент в клетке трансформированного штамма, за счет этого повышается, и в результате ферментативная активность увеличивается. Этот способ будет объяснен далее на примере суо-оперона (cyoABCDE), кодирующего цитохромоксидазу bo как гена фермента дыхательной пути с высоким энергетическим выходом.
Последовательность суо-оперона Е.coli уже описана (Chepuri et al., The Journal of Biological Chemistry, 265:11185-11192, 1990), поэтому этот оперон может быть клонирован на основе этой последовательности. Также в качестве суо-оперона можно использовать ген бактерии, принадлежащей к роду Escherichia, или ген, полученный из других организмов, таких как коринеформные бактерии.
В качестве вектора для клонирования гена и введения гена в микроорганизм может быть использована, например, плазмида, способная к спонтанной репликации в клетках Е.coli. Конкретными примерами таких векторов являются pUC19, pUC18, pBR322, PHSG299, pHSG298, pHSG399, pHSG398, RSF1010, pSTV29 и т.д. В случае введения гена в коринеформные бактерии предпочтительно может быть использован шаттл-вектор, способный к спонтанной репликации в коринеформных бактериях и Е.coli. Примеры плазмид, спонтанно реплицирующихся в коринеформных бактериях и Е.coli, перечислены ниже.
рАМ 330 (см. нерассмотренную публикацию японского патента (Kokai) №58-67699)
рНМ 1519 (см. нерассмотренную публикацию японского патента №58-77895)
pAJ 655 (см. нерассмотренную публикацию японского патента №58-192900)
pAJ 611 (см. нерассмотренную публикацию японского патента №58-192900)
pAJ 1844 (см. нерассмотренную публикацию японского патента №58-192900)
pCG 1 (см. нерассмотренную публикацию японского патента №57-134500)
pCG 2 (см. нерассмотренную публикацию японского патента №58-35197)
pCG 4 (см. нерассмотренную публикацию японского патента №57-183799)
pCG11 (см. нерассмотренную публикацию японского патента №57-183799)
рНК4 (см. нерассмотренную публикацию японского патента №5-7491)
Для того чтобы лигировать фрагмент ДНК, содержащий суо-оперон, и вектор с образованием рекомбинантной ДНК, вектор вначале расщепляют рестрикционным ферментом, приемлемым для концов суо-оперона. Лигирование обычно осуществляют с использованием лигазы, такой как ДНК лигаза фага Т4.
Чтобы ввести в микроорганизм рекомбинантную ДНК, полученную, как описано выше, может быть использован любой известный метод трансформации. Например, можно использовать способ обработки реципиентных клеток хлоридом кальция, чтобы повысить проницаемость ДНК, который был описан для Е.coli K-12 (Mandel М., Higa A., J.Mol.Biol., 53, 159, 1970); и способ получения компетентных клеток из клеток, которые находятся в фазе роста, с последующим введением в них ДНК, который описан для Bacillus subtilis (Duncan C.H., Wilson G.A., Young F.E., Gene, 1, 153, 1977). Помимо этих способов также можно использовать способ получения ДНК реципиентных клеток в протопластах или сферопластах, которые могут легко принимать рекомбинантную ДНК с последующим введением рекомбинантной ДНК в клетки; этот способ, как известно, применим для Bacillus subtilis, актиномицетов и дрожжей (Chang S., Choen S.N., Molec. Gen. Genet., 168, 111, 1979; Bibb M.J., Ward J.M., Hopwood O.A., Natute, 274, 398, 1978; Hinnen A., Hicks J.B., Fink G.R., Proc. Natl. Sci., USA, 75, 1929, 1978). Трансформация коринеформных бактерий может быть достигнута с помощью метода электропробы (см. нерассмотренную публикацию японского патента №2-207791).
Амплификация активности цитохромоксидазы bo также может быть достигнута за счет того, что делается возможным существование множества копий суо-оперона на хромосомной ДНК реципиента. Для того чтобы ввести множество копий суо-оперона в хромосомную ДНК микроорганизма, такого как бактерии, принадлежащие роду Escherichia, или коринеформные бактерии, осуществляют гомологическую рекомбинацию с использованием последовательности, множественные копии которой существуют в хромосомной ДНК в качестве мишеней. В качестве последовательностей, множественные копии которых присутствуют в хромосомной ДНК, могут быть использованы повторяющаяся ДНК или инвертированные повторы, присутствующие на конце перемещающегося генетического элемента. Кроме того, как описано в нерассмотренной публикации японского патента №2-109985, также можно вводить суо-оперон в транспозон и получать возможность его переноса, чтобы ввести множество копий суо-оперона в хромосомную ДНК. Любым способом повышается число копий суо-оперона внутри клетки, и в результате повышается активность цитохромоксидазы bo.
Усиление активности цитохромоксидазы bo также может быть достигнуто помимо описанной выше амплификации гена путем замены регулирующей экспрессии на последовательности суо-оперона, такой как промотор, более сильным промотором (см. нерассмотренную публикацию японского патента №1-215280). Например, lac промотор, trp промотор, trc промотор, tac промотор, PR промотор и PL промотор лямбда фага, tet промотор, аmуЕ промотор и т.д. известны как сильные промоторы. Замещение этими промоторами усиливает экспрессию суо-оперона и, следовательно, активность цитохромоксидазы bo увеличивается. Усиление регулирующей экспрессии последовательности может быть объединено с повышением числа копий суо-оперона.
Повышение активности фермента дыхательной цепи с высоким энергетическим выходом также может быть достигнуто путем введения такой мутации, что внутриклеточная активность фермента будет повышена через мутагенез микроорганизма. Примерами таких мутаций являются мутации кодирующей области, повышающие удельную активность фермента, мутации в регулирующих экспрессию последовательностях, увеличивающие экспрессию гена, и т.д. В качестве мутагенной обработки можно упомянуть способы, в которых используется обработка ультрафиолетовым излучением или обработка мутагенным агентом, таким как N-метил-N’-нитро-N-нитрозогуанидин (NTG) и азотистая кислота.
Для того чтобы уменьшить или устранить активность фермента дыхательной цепи с низким энергетическим выходом, в ген вводят мутацию так, что внутриклеточная активность фермента будет уменьшаться или устраняться, или ген на хромосоме микроорганизма разрушают так, что ген не будет нормально функционировать. Далее на примере гена ndh, кодирующего NDH-II как гена фермента дыхательной цепи с низким энергетическим выходом, будет объяснен способ разрушения ndh гена.
Последовательность ndh гена Е.coli уже описана (Young et al., European Journal of Biochemistry, 116:165-170, 1981), и поэтому ген может быть клонирован на основе этой последовательности. Также в качестве ndh гена можно использовать ген бактерии, принадлежащей к роду Escherichia, или ген, полученный из других организмов, таких как кориноформные бактерии.
Ген ndh на хромосоме может быть разрушен путем трансформации микроорганизма с помощью ДНК, содержащей ndh ген, модифицированный путем внутренней делеции так, чтобы он не продуцировал нормально функционирующую NDH-II (ndh ген делеционного типа), и создания возможности рекомбинации между ndh геном делеционного типа и ndh геном на хромосоме. Такое разрушение гена путем гомологической рекомбинации уже было представлено, и существуют способы, использующие линейную ДНК, плазмиду, которая содержит чувствительную к температуре, контролирующую репликацию область и т.д. В настоящем изобретении предпочтителен способ, использующий плазмиду, которая содержит чувствительную к температуре контролирующую репликацию область.
Ген ndh на хромосоме реципиента может быть замещен ndh геном делеционного типа следующим образом. Вначале получают рекомбинантную ДНК путем вставки чувствительной к температуре контролирующей репликацию области, ndh гена делеционного типа и маркерного гена устойчивости к лекарственному средству, полученной рекомбинантной ДНК трансформируется микроорганизм. Затем полученный трансформант культивируют при температуре, при которой чувствительная к температуре, контролирующая репликацию область не функционирует, и далее трансформант выращивают в среде, содержащей лекарственное средство, чтобы получить трансформированный штамм, в которой рекомбинантная ДНК введена в хромосомную ДНК.
В такой линии, где рекомбинантная ДНК введена в хромосомную ДНК, ndh ген делеционного типа рекомбинирован с ndh геном, изначально присутствующем на хромосоме, и два слитых гена хромосомного ndh гена и ndh гена делеционного типа введены в хромосому так, что другие части рекомбинантной ДНК (векторный сегмент, чувствительная к температуре контролирующая репликацию область и устойчивый к лекарству маркер) будут присутствовать между двумя слитыми генами. Следовательно, трансформант экспрессирует NDH-II, так как в этом состоянии нормальный ndh ген является доминантным.
Затем для того чтобы на хромосомной ДНК оставить только ndh ген делеционного типа, одну копию ndh гена из хромосомной ДНК удаляют вместе с векторным сегментом (включая чувствительную к температуре, контролирующую репликацию область и маркер лекарственной устойчивости) путем рекомбинации двух ndh генов. В этом случае нормальный ndh ген остается на хромосомной ДНК, а ndh ген делеционного типа вырезается из хромосомной ДНК или наоборот ndh ген делеционного типа остается на хромосомной ДНК, а нормальный ndh ген вырезается из хромосомной ДНК. В обоих случаях вырезаемая ДНК может быть сохранена в клетке как плазмида, когда клетку культивируют при температуре, при которой может функционировать чувствительная к температуре контролирующая репликацию область. Впоследствии клетку выращивают при температуре, при которой чувствительная к температуре, контролирующая репликацию область не может функционировать, чтобы элиминировать плазмидную ДНК, и может быть получен мутант с ndh геном делеционного типа.
Примерами вектора, имеющего чувствительную к температуре точку инициации репликации для Е.coli, являются плазмида pMAN997, описанная в Международной патентной публикации WO 99/03988, и т.д., а примером вектора, имеющего чувствительную к температуре точку инициации репликации для коринеформных бактерий, является плазмида pHSC4, описанная в нерассмотренной публикации японского патента №5-7491, и т.д. Однако плазмиды не ограничены этими плазмидами, и могут быть также использованы другие векторы.
Конкретными примерами таких микроорганизмов, полученных способом, описанным выше, являются микроорганизмы, у которых SoxM-оксидаза или NDH-I, или обе из них усилены, микроорганизмы, у которых активность цитохромоксидазы bd, или NDH-II, или активности обеих уменьшены, и микроорганизмы, у которых SoxM-оксидаза, или NDH-I, или обе из них усилены, а активность цитохромоксидазы bd, или NDH-II, или активности обеих понижены или устранены. Более конкретно можно назвать, например, Е.coli, где активность SохМ-оксидазы усилена, а NDH-II сделана дефицитной. Примером SохМ-оксидазы является цитохромоксидаза bo.
Микроорганизм, использованный в настоящем изобретении, не имеет особенных ограничений, пока ему могут быть приданы упомянутые выше свойства, и примерами такого микроорганизма являются бактерии, принадлежащие роду Eschirichia, такие как Е.coli, коринеформные бактерии, такие как Brevibacterium lactofermentum (Corynebacterium glutamicum), бактерии Bacillus, такие как Bacillus subtilis, бактерии Serratia, такие как Serratia marcescens, дрожжи, такие как Saccharomyces cerevisae, и т.д.
Если говорить более конкретно, то когда продуктом ферментации является L-треонин, можно назвать Е.coli VKPM В-3996 (RIA 1867) (см. патент США №5175107), Corynebacterium acetoacidophilum AJ12318 (FERM BP-1172) (см. патент США №5188949) и т.д.; в случае L-лизина можно назвать Е. coli AJ11442 (NRRL В-12185, FERM ВР-1543) (см. патент США №4346170), Е.coli W3110 (tyrA) (эта линия получена путем удаления плазмиды pHATerm из Е.coli W3110 (tyrA)/pHATerm (FERM ВР-3653) (см. Международную патентную публикацию WO 95/16042), Brevibacterium lactofermentum AJ12435 (FERM BP-2294) (см. патент США №5304476), Brevibacterium lactofermentum AJ3990 (АТСС31269) (см. патент США №4066501) и др.; в случае L-глутаминовой кислоты можно назвать Е.coli AJ12624 (FERM ВР-3853) (см. нерассмотренную публикацию французского патента №2680178), Brevibacterium lactofermentum AJ12821 (FERM BP-4172) (см. нерассмотренную публикацию японского патента №5-26811, нерассмотренную публикацию французского патента №2701489), Brevibacterium lactofermentum AJ12475 (FERM BP-2922) (см. патент США №5272067), Brevibacterium lactofermentum AJ13029 (FERM BP-5189) (см. Международную патентную публикацию JP(?) 95/01586) и др.; в случае L-лейцина можно назвать Е.coli АJ1478 (FERM P-5274) (см. Публикацию японского патента (Kokoku) №62-34397), Brevibacterium lactofermentum AJ3718 (FERM P-2516) (см. патент США №3970519) и др.; в случае L-изолейцина можно назвать Е.coli KX141 (VKPM B-4781) (см. нерассмотренную европейскую патентную публикацию №519113), Brevibacterium flavum AJ12149 (FERM BP-759) (см. патент США №4656135) и др.; в случае L-валина можно назвать Е.coli VL1970 (VKPM В-4411) (см. нерассмотренную европейскую патентную публикацию №519113), Brevibacterium lactofermentum AJ12341 (FERM BP-1763) (см. патент США №5188948) и др.; в случае L-фенилаланина можно назвать Е.coli AJ12604 (FERM BP-3579) (см. нерассмотренную публикацию японского патента №5-236947, нерассмотренную европейскую патентную публикацию №488424), Brevibacterium lactofermentum AJ12673 (FERM BP-4160) (см. нерассмотренную публикацию патента Франции №2686898) и т.д.
В микроорганизме использованный в настоящем изобретении, в зависимости от целевого вещества активность фермента, вовлеченного в биосинтез целевого вещества, может быть усилена. Кроме того, активность фермента, неблагоприятного для синтеза целевого соединения, может быть уменьшена или исключена.
Целевое вещество может быть получено путем выращивания такого микроорганизма, как микроорганизм, описанный выше, в среде с целью продуцирования и накопления целевого вещества в среде и сбора целевого вещества.
Среда, используемая для получения целевого вещества, может быть обычно используемой хорошо известной средой, выбранной в зависимости от применяемого микроорганизма. То есть среда может представлять собой обычную среду, содержащую источник углерода, источник азота, неорганические ионы, а также другие органические компоненты, если это необходимо. Никакая специальная среда в настоящем изобретении не требуется.
В качестве источника углерода можно использовать сахара, такие как глюкоза, лактоза, галактоза, фруктоза или крахмальный гидролизат; спирты, такие как глицерин или сорбит; органические кислоты, такие как фумаровая кислота, лимонная кислота или янтарная кислота и т.д.
В качестве источника азота возможно использование неорганических аммонийных солей, таких как сульфат аммония, хлорид аммония или фосфат аммония; органического азота, такого как гидролизат соевых бобов; газообразный аммиак; водный аммиак и др.
Желательно, чтобы требуемые вещества, такие как витамин B1, L-гомосерин и L-тирозин или дрожжевой экстракт, содержались в соответствующем количестве в качестве питательных органических веществ, добавленных в незначительных количествах. Помимо вышеназванных веществ в небольших количествах добавляют фосфат калия, сульфат магния, ион железа, ион марганца и т.п., если это необходимо.
Выращивание может быть осуществлено при обычно используемых хорошо известных условиях, выбранных в соответствии с применяемым микроорганизмом. Например, выращивание предпочтительно осуществлять в аэробных условиях в течение 16-120 часов. Температура выращивания предпочтительно регулируется так, чтобы она находилась в интервале от 25 до 45°С, а величина рН во время выращивания предпочтительно устанавливается при 5-8. Неорганические или органические, кислые или щелочные вещества, а также газообразный аммиак и подобные вещества могут быть использованы для доведения величины рН.
Для сбора метаболических продуктов из среды после выращивания в настоящем изобретение не требуется никаких специальных методов. То есть настоящее изобретение может быть осуществлено на практике с использованием сочетания обычных хорошо известных ионнообменных методик, методик треципитации и других методик.
Наилучший способ осуществления изобретения
Далее настоящее изобретение объясняется более подробно с помощью следующих примеров.
Пример 1: Клонирование гена цитохромоксидазы bo
Последовательность суо-оперона (cyoABCDE), кодирующая цитохромоксидазы bо Е.coli, уже описана (Chepure et al., The Journal of Biological Chemistry, 265:11185-11192, 1990), и поэтому оперон был клонирован на основе этой последовательности.
Более конкретно, ген целевого суо-оперона получали из библиотеки фагов Kohara (Kohara et al., Cell, 50:495-508, 1987), содержащей суо-оперон. Фаговую ДНК получали из фагового клона 147[2Н5] Kohara, содержащего оперон, с использованием лямбда-препарата Wizard (Promega). Полученную фаговую ДНК 147[2Н5] расщепляли с помощью PshBI, и полученный фрагмент размером 5.5 т.п.н., содержащий суо-оперон, “затупляли по концам” и вставляли в SmaI-сайт вектора pMW119 (Nippon Gene), чтобы клонировать суо-оперон, содержащий промоторную область. В полученной плазмиде суо-оперон был вставлен в обратном направлении относительно промотора лактозного оперона вектора pMW119. Эту плазмиду обозначали как pMW(CYO)B.
Плазмиду pMW(CYO)B вводили в штамм Е.coli W3110 (полученный из National Institute of Genetics, Mishima, Shizuoka, Япония) с получением штамма W3110/pMW(CYO)В. Активность убихинолоксидазы, присутствующей в клеточных экстрактах штамма W3110 и штамма W3110/pMW(CYO)B, измеряли как активность концевой оксидазы с использованием известного метода (Kita et al., The Journal of Biological Chemistry, 259:3368-3374, 1984). Полученные результаты представлены в таблице 1.
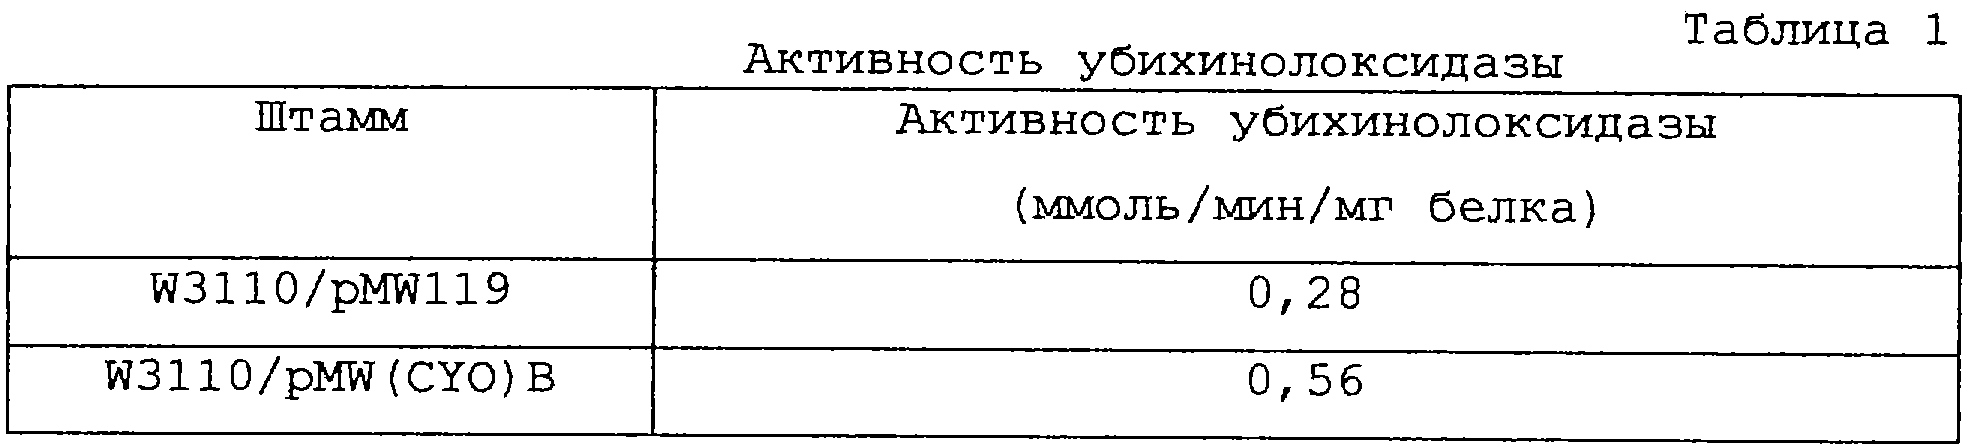
Установлено, что активность концевой оксидазы повышалась в штамме, в который введена плазмида pMW(CYO)B, как это видно из данных таблицы 1. Это усиление активности концевой оксидазы, как считают, вызвано усилением активности цитохромоксидазы bo за счет усиления суо-оперона.
Пример 2: Создание NDH-II-дефицитной линии
Для того чтобы получить NDH-II-дефицитную линию, получали внутренне-расщепленную частичную последовательность гена NDH-II (разрушенный ген NDH-II). Частичную последовательность гена NDH-II клонировали на основе известной последовательности ndh гена Е.coli, кодирующего NDH-II (Young et al. European Journal of Biochemistry, 116:165-170, 1981).
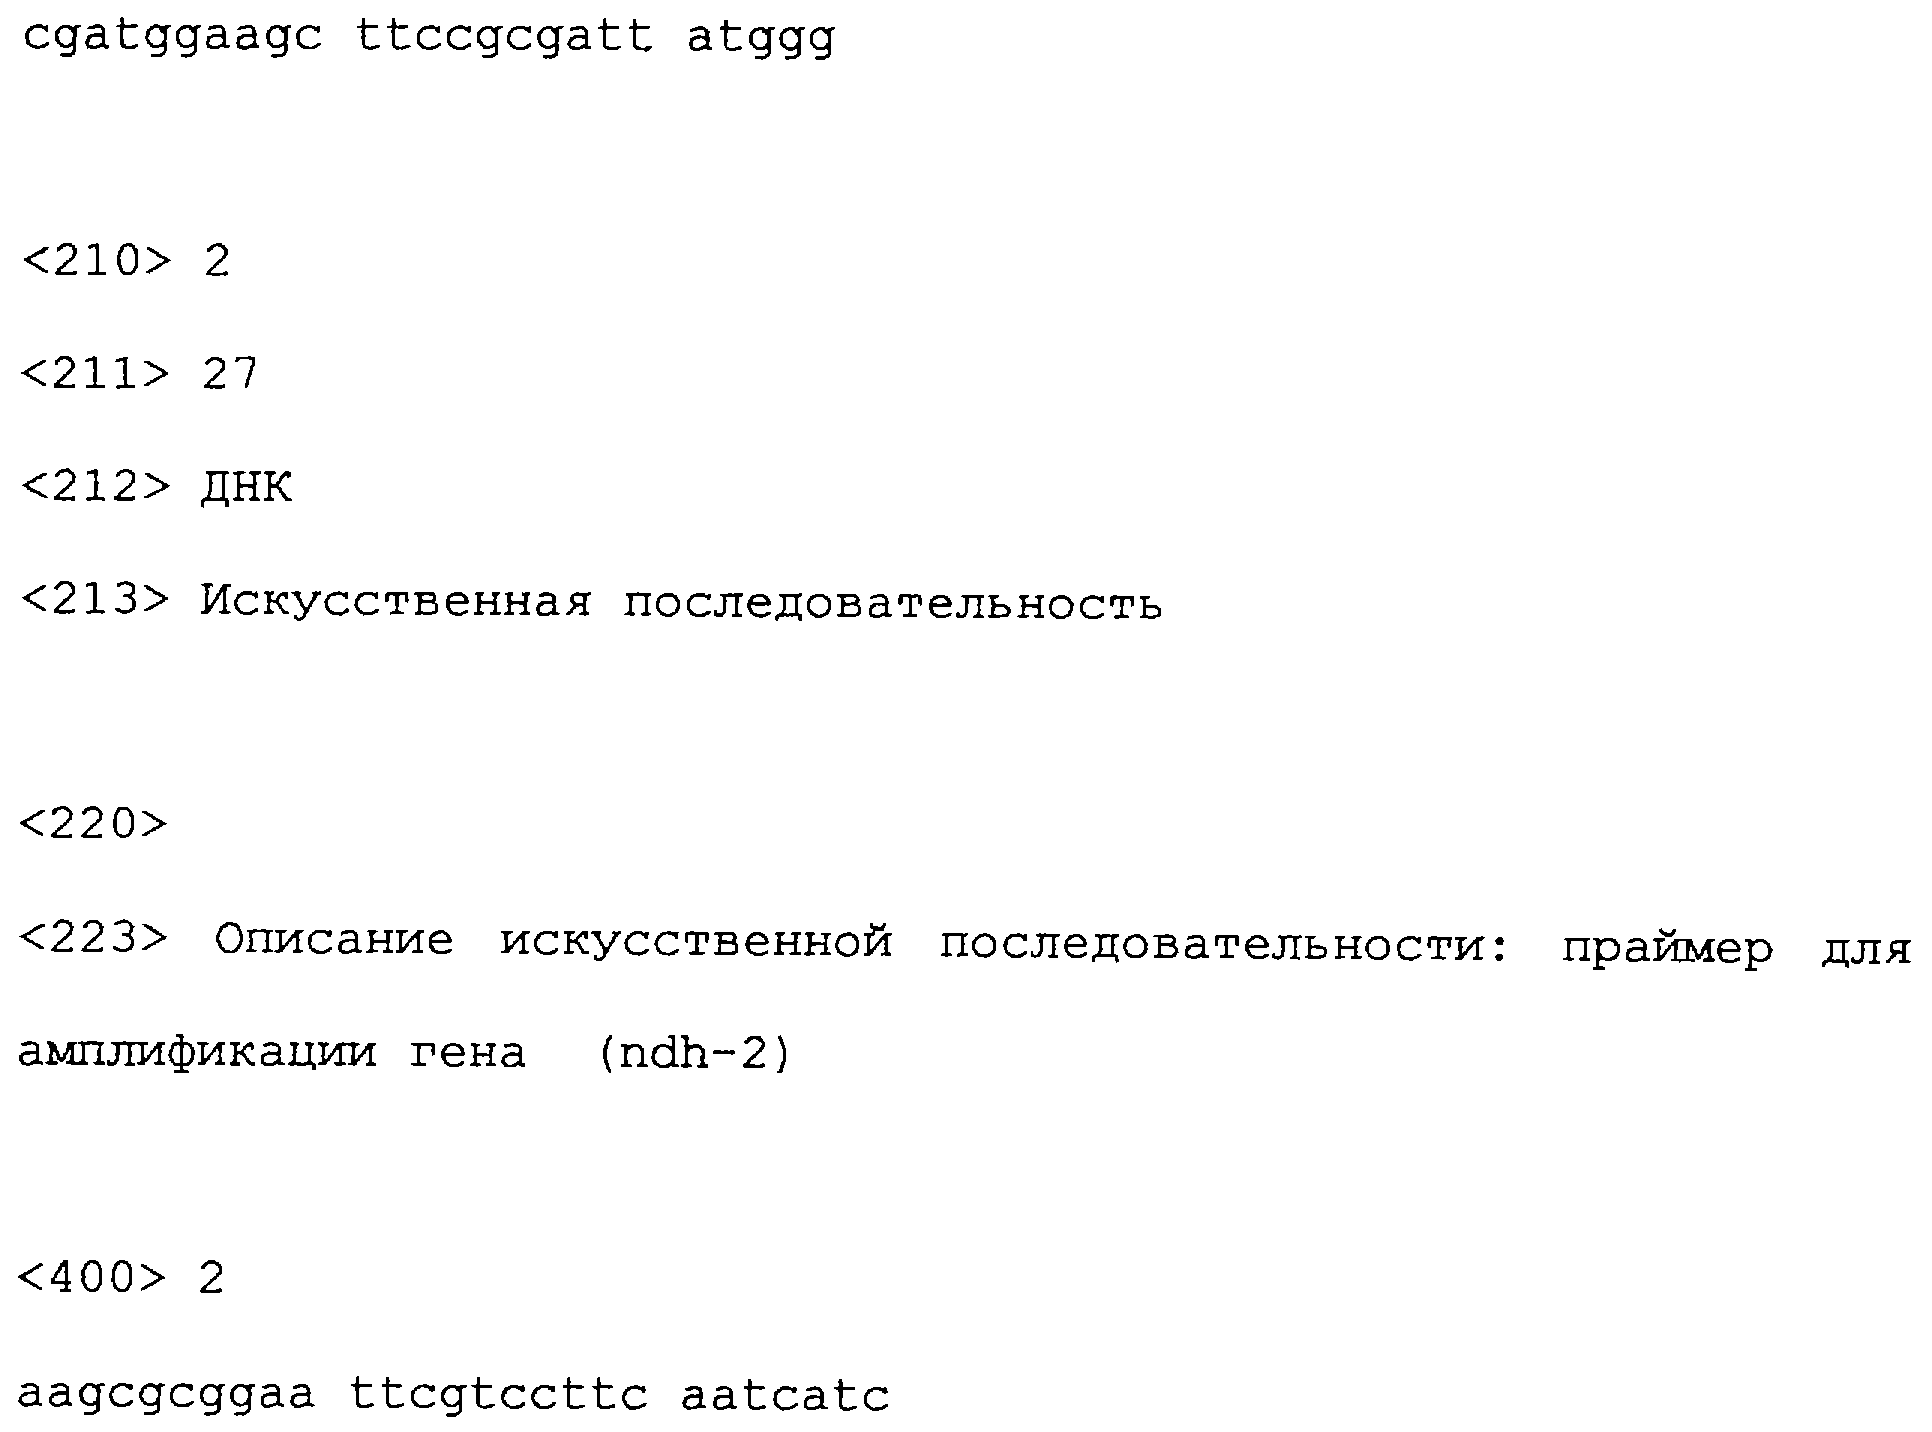
Более конкретно, разрушенный ген NDH-II получают следующим образом (фиг.1). Во-первых, фрагмент ДНК размером приблизительно 2.4 т.п.н., содержащий частичную последовательность гена NDH-II, получали путем амплификации хромосомной ДНК Е.coli с помощью ПЦР с использованием в качестве праймеров ndh-1 (SEQ ID NO: 1) и ndh-2 (SEQ ID NO: 2). Этот фрагмент клонировали в вектор pGEM-T (Promega) с получением плазмиды pGEM-ndh. Плазмиду pGEM-ndh расщепляли рестрикционными ферментами EcoRI и StuI, и полученный фрагмент ДНК размером 0.5 т.п.н. отбирали и лигировали с pTWV229 (Takara Shuzo), расщепленной ферментами EcoRI и StuI, с получением плазмиды pTWV-ndh.
Затем плазмиду pTWV-ndh расщепляли рестрикционным ферментом StuI, и полученный фрагмент размером 0.9 т.п.н. отбирали и вводили в HincII сайт плазмиды pTWV-ndh. Таким образом, получали плазмиду pTWVΔ ndh, содержащую часть множества сайтов рестрикции плазмиды pTWV229 в частичной последовательности ndh-гена. Плазмида pTWVΔ ndh содержит ndh-последовательность, вставленную с последовательностью из 17 пар оснований, берущую начало от pTWV299 при StuI-сайте, в ndh-последовательности. Затем фрагмент размером 1.5 т.п.н., полученный расщеплением pTWVΔ ndh с помощью HindII- и EcoRI, вставляли между HindII и EcoRI-сайтами чувствительной к температуре плазмиды pMAN997 (см. Международную патентную публикацию WO 99/03988) с получением плазмиды pTS-Δ ndh. Гомологическую рекомбинацию проводили между этой плазмидой pTS-Δ ndh и геномом штамма W3110 относительно ndh-гена с помощью обычной методики рекомбинации с использованием чувствительной к температуре плазмиды pTS-Δ ndh (Matuyama et al., Journal of Bacteriology, 162:1196, 1985) с получением штамма W3110(ndh), который не экспрессировал нормальный белок NDH-II, потому что последовательность из 17 пар оснований, происходящая от pTWV299, вставлена в кодирующую область ndh на геноме. Из штамма W3110 (tyrA) в штамм W3110 (ndh) вводили дефицитность по гену tyrA путем P1 трансдукции с использованием устойчивости к тетрациклину в качестве маркера с получением штамма W3110 (ndh, tyrA).
Упомянутая выше плазмида pMAN997 получена путем обмена VspI-HindIII фрагментов pMAN031 (J. Bacteriol., 162, 1196, 1985) и вектора pUC19 (Takara Shuzo) (фиг.2).
Кроме того, хотя штамм W3110 (tyrA) подробно описан в нерассмотренной публикации европейского патента №488424/1992, способ его получения кратко описан ниже.
Штамм Е.coli W3110 получен из National Institute of Genetics (Mishima, Shizuoka). Этот штамм высевали на LB-чашку, содержащую стрептомицин, и отбирали штамм, который образует колонию, получая штамм, устойчивый к стрептомицину. Отобранный устойчивый к стрептомицину штамм и штамм Е.coli K-12 ME8424 смешивали и выращивали в полной среде (L-жидкая питательная среда: 1% бактотриптона, 0,5% дрожжевого экстракта, 0,5% NaCl) при 37°С в течение 15 минут как стационарную культуру, чтобы индуцировать конъюгацию. Штамм Е.coli K-12 ME8424 имеет генетические признаки (HfrPО45, thi, relAl, tyrA:Tn10, ung-1, nadB), и его можно получить в National Institute of Genetics. Затем культуру высевали в полную среду (L-жидкая питательная среда: 1% бактотриптона, 0,5% дрожжевого экстракта, 0,5% NaCl, 1,5% агара), содержащую стрептомицин, тетрациклин и L-тирозин, и отбирали штамм, который образовывал колонию. Этот штамм обозначали как Е.coli W3110 (tyrA).
Нерассмотренная публикация европейского патента №488424/1992 раскрывает много штаммов, полученных путем введения плазмиды в вышеописанный штамм. Например, штамм, полученный путем введения плазмиды pHATerm, обозначен как Е.coli W3110 (tyrA)/pHATerm, сдан на хранение 16 ноября 1991 г. в National Institute of Bioscience and Human-Technology, Agency of Industrial Science and Technology, Ministry of International Trade and Industry (1-3 Higashi 1-Chome, Tsukuba-shi, Ibaraki-ken, Japan, почтовый код: 305 (в настоящее время независимая административная корпорация, National Institute of Advanced Industrial Science and Technology, International Patent Organism Depositary (Chuo Dai-6, 1-1 Higashi 1-Chome, Tsukuba-shi, Ibaraki-ken, Japan, почтовый код: 305-5466) в качестве международного банка хранения, предусмотренного Будапештским Договором, и получила номер по каталогу FERM ВР-3653. Штамм Е.coli W3110 (tyrA) может быть получен путем элиминации плазмиды pHATerm из описанного выше штамма обычным способом.
Пример 3: Получение L-лизина
Плазмиду pMW(CYO)B, полученную в примере 1, вводили в штамм W3110 (tyrA) и штамм W3110 (ndh, tyrA), полученные в примере 2, с получением соответственно штаммов W3110 (tyrA)/pMW(CYO)B и W3110(ndh, tyrA)/pMW(CYO)В. Аналогично плазмиду pMW119 вводили в штамм W3110 (tyrA) с получением штамма W3110 (tyrA)/pMWl19. Путем выращивания в колбе оценивали продуктивность по L-лизину штамма W3110 (tyrA)/pMW(CYO)В, штамма W3110 (ndh, tyrA)/pMW(CYO)В и линии W3110 (tyrA)/pMW119 в качестве контроля. Выращивание проводили с использованием среды, имеющей приведенный ниже состав, при 37°С в течение от 24 до 48 часов при встряхивании. Полученные результаты приведены в таблице 2.
Состав среды
Глюкоза 40 г/л
MgSO4• 7H2O 1 г/л
KH2PO4 1 г/л
FeSO4• 7H2O 0,01 г/л
MnSO4• 5H2O 0,01 г/л
Дрожжевой экстракт (Difco) 2 г/л
L-тирозин 0,1 г/л или 0,05 г/л
Величину рН среды доводили до 7,0 с помощью КОН, и среду выдерживали в автоклаве при 115°С в течение 10 минут. Однако глюкозу и МgSO4• 7Н2O стерилизовали отдельно. Кроме того, в соответствии с Фармакопеей Японии перед выращиванием к среде добавляли 30 г/л СаСОз, который подвергнут сухой стерилизации при 180°С, и 100 мкг/л антибиотиков, ампициллина.
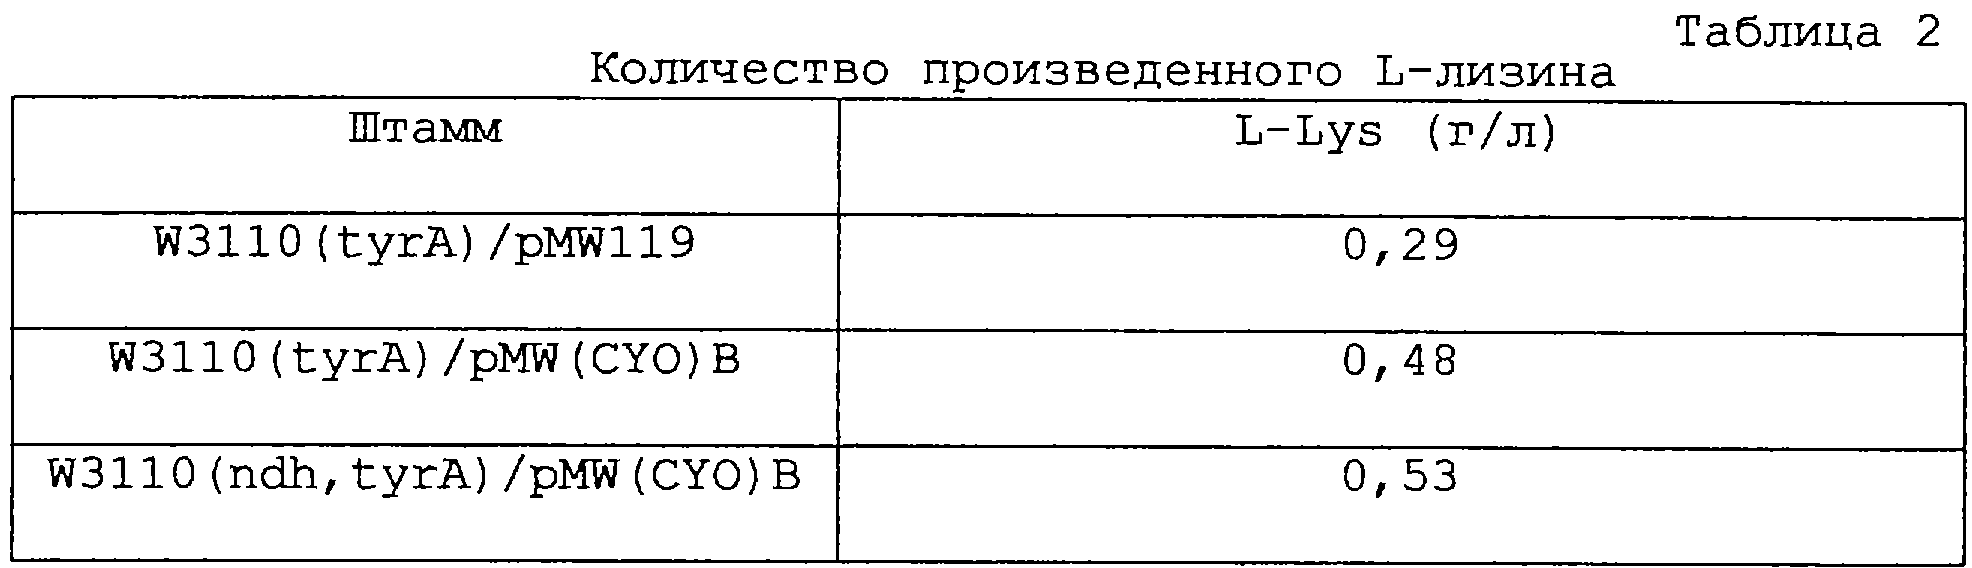
Установлено, что продуктивность по L-лизину улучшается в продуцирующих L-лизин бактериях Е.coli за счет усиления активности цитохромоксидазы bo. Это, как считают, происходит из-за того, что эффективность энергонакопления улучшается за счет усиления пути дыхательной цепи с высоким энергетическим выходом, и эта энергия используется для производства L-лизина.
Также установлено, что продуктивность по L-лизину улучшается в продуцирующих L-лизин бактериях Е.coli, сделанных дефицитными по NDH-II. Это, как считают, происходит из-за того, что эффективность энергонакопления улучшается за счет дефицитности пути дыхательной цепи с низким энергетическим выходом, и энергия используется для производства L-лизина.
Пример 4: Получение L-треонина
Плазмиду pMW(CYO)B, полученную описанным выше способом, вводили в продуцирующую L-треонин бактерию Е.coli VKPM В-3996 (RIA 1867) (см. патент США №5175107, далее называемую штаммом “В-3996”) с получением штамма B-3996/pMW(CYO)В. Штамм В-3996 нес плазмиду pVIC40 (Международная патентная публикация WO 90/04636), полученную путем вставки оперона треонина в векторную плазмиду pAYC32 широкого круга хозяев, содержащую устойчивый к стрептомицину маркер (см. Chistorerdov A.Y., Tsygankov Y.D., Plasmid, 1986, 16, 161-167). Штамм В-3996 депонирован в Институте исследования антибиотиков (СССР) (ВНИИА) под регистрационным номером RIA1867.
В качестве контроля получен штамм B-3996/pMW119 путем введения в штамм В-3996 плазмиды pMW119. Продуктивность по L-треонину этих штаммов B-3996/pMW (CYO)В и B-3996/pMW119 оценивали при выращивании в колбе. Выращивание проводили с использованием среды, имеющей состав, приведенный в таблице 3, при температуре 37°С в течение 38 часов при перемешивании со скоростью 114-116 об/мин. Компонент А, Компонент В и Компонент С, которые приведены в таблице 3, приготовлены и стерилизованы по отдельности, а затем охлаждены и смешаны в соотношении 16/20 объема Компонента А, 4/20 объема Компонента В и 30 г/л Компонента С. Полученные результаты представлены в таблице 4.

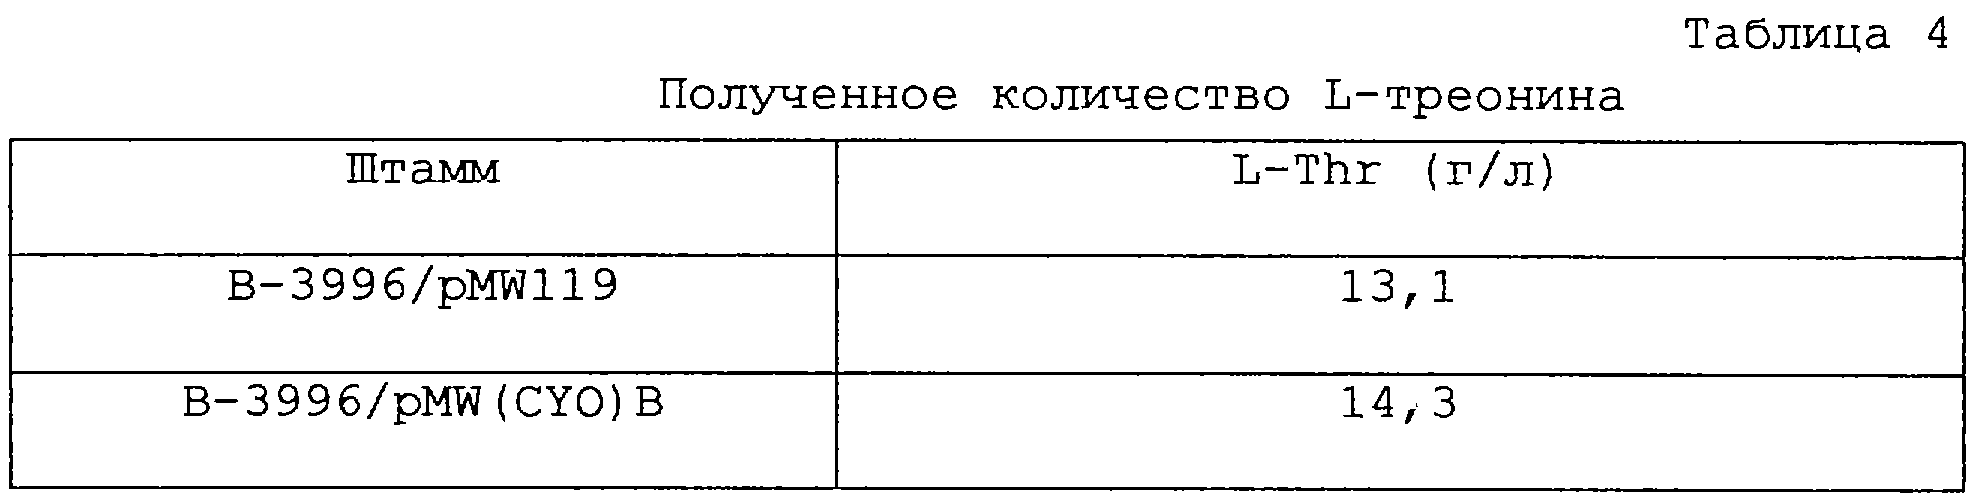
Установлено, что продуктивность по L-треонину продуцирующих L-треонин бактерий Е.coli может быть улучшена путем повышения активности цитохром bо-оксидазы.
Пример 5: Получение L-фенилаланина
Плазмиду рАСМАВ выделяли из штамма Е.coli W3110 (tyrA)/pACMAB, pBR-aroG4 в соответствии с обычным способом очистки плазмиды. Плазмида представляла собой плазмиду, полученную путем вставки фрагмента ДНК, содержащего ген для десенсибилизированной хоризматмутаза/префенатдегидротазы (СМ-PDH) в соответствующей системе биосинтеза L-фенилаланина, между BamHI- и HindIII-рестрикционными сайгами векторной плазмиды pACYC184 (Арr) (см. Международную патентную публикацию WO 97/08333). Штамм W3110 (tyrA)/pACMAB, pBR-aroG4 (обозначаемый как AJ12604) сдан на хранении в National Institute of Bioscience and Human-Technology, Agency of Industrial Science and Technology, Ministry of International Trade and Industry (1-3 Higashi 1-Chome, Tsukuba-shi, Ibaraki-ken, Japan, почтовый код: 305) и получил номер по каталогу FERM Р-11975. Затем он был передан в международный банк хранения в соответствии с Будапештским Договором от 26 сентября 1991 г. и получил номер по каталогу FERM BP-3579.
Плазмиду pACMAB “затупляли по концам” путем расщепления ферментом SalI. В нее вставляли “затупленный по концам” фрагмент ДНК, содержащий суо-оперон размером 5.5 т.п.н., который получен из ДНК фага 147[2Н5] Kohara, упомянутого выше, путем расщепления с помощью PshBI. Полученную плазмиду рАСМАВ-суо вводили в штамм W3110 (tyrA/pBR-aroG4). Полученный трансформант выращивали в среде для получения L-фенилаланина (содержащую 20 г глюкозы, 29,4 г гидрофосфата натрия, 6 г дигидрофосфата калия, 1 г хлорида натрия, 2 г хлорида аммония, 10 г цитрата натрия, 0,4 г глутамата натрия, 3 г семиводного гидрата сульфата магния, 0,23 г хлорида кальция, 2 мг гидрохлорида тиамина и 100 мг L-тирозина в 1 л воды, рН 7,0) при 37°С в течение 40 часов. L-фенилаланин, содержащийся в среде, количественно оценивали с помощью высокоэффективной жидкостной хроматографии. Полученные результаты представлены в таблице 5.

Установлено, что продуктивность по L-фенилаланину продуцирующих L-фенилаланин бактерий Е.coli улучшается за счет усиления активности цитохромоксидазы bo.

Claims (8)
1. Способ получения L-аминокислоты с использованием микроорганизма, включающий стадии выращивания микроорганизма в среде для продуцирования и накопления L-аминокислоты в среде и сбора L-аминокислоты, где микроорганизм создан из родительского штамма микроорганизма, имеющего путь дыхательной цепи с высоким энергетическим выходом и путь дыхательной цепи с низким энергетическим выходом в качестве путей дыхательной цепи, и этот микроорганизм представляет собой мутантный штамм или штамм генетического рекомбинанта, имеющего одну или обе из следующих характеристик: A) Путь дыхательной цепи с высоким энергетическим выходом усилен; B) Путь дыхательной цепи с низким энергетическим выходом является дефицитным, где микроорганизм выбирают из группы, состоящей из бактерии, принадлежащей к роду Escherichia, и коринеформной бактерии.
2. Способ получения L-аминокислоты по п.1, где путь дыхательной цепи с высоким энергетическим выходом усилен путем увеличения копийности гена, кодирующего фермент, вовлеченный в дыхательную цепь, или модификации, регулирующей экспрессию последовательности гена.
3. Способ получения L-аминокислоты по п.1 или 2, где путь дыхательной цепи с низким энергетическим выходом сделан дефицитным путем разрушения гена, кодирующего фермент, вовлеченный в дыхательную цепь.
4. Способ получения L-аминокислоты по любому из пп.1-3, где ферментами дыхательной цепи с высоким энергетическим выходом у коринеформных бактерий являются bс 1-комплекс и SoxM-оксидаза, а у бактерий рода Escherichia - NDH-I и SoxM-оксидаза.
5. Способ получения L-аминокислоты по любому из пп.1-4, где ферментами дыхательной цепи с низким энергетическим выходом у бактерий рода Escherichia являются цитохромоксидаза bd и NDH-II, а у коринеформных бактерий - цитохромоксидаза bd.
6. Способ получения L-аминокислоты по любому из пп.1-5, где в микроорганизме активность SoxM-оксидазы усилена, а NDH-II сделана дефицитной.
7. Способ получения L-аминокислоты по любому из пп.1-6, где фермент пути дыхательной цепи с высоким энергетическим выходом представляет собой цитохромоксидазу bo.
8. Способ получения L-аминокислоты по любому из пп.1-7, где микроорганизм представляет собой бактерию, принадлежащую к роду Escherichia.
Applications Claiming Priority (2)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2000-204252 | 2000-05-07 | ||
| JP2000204252A JP4380029B2 (ja) | 2000-07-05 | 2000-07-05 | 微生物を利用した物質の製造法 |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| RU2001118542A RU2001118542A (ru) | 2003-06-20 |
| RU2238325C2 true RU2238325C2 (ru) | 2004-10-20 |
Family
ID=18701548
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| RU2001118542A RU2238325C2 (ru) | 2000-07-05 | 2001-07-04 | Способ получения l-аминокислоты c использованием микроорганизма |
Country Status (16)
| Country | Link |
|---|---|
| US (2) | US8586334B2 (ru) |
| EP (2) | EP2067864B1 (ru) |
| JP (1) | JP4380029B2 (ru) |
| KR (1) | KR100805644B1 (ru) |
| CN (1) | CN1280419C (ru) |
| AT (2) | ATE501265T1 (ru) |
| AU (1) | AU782560B2 (ru) |
| BR (1) | BRPI0102666B1 (ru) |
| DE (2) | DE60144205D1 (ru) |
| DK (2) | DK2067864T3 (ru) |
| ES (2) | ES2331601T3 (ru) |
| MY (1) | MY127434A (ru) |
| PE (1) | PE20020172A1 (ru) |
| PL (1) | PL206590B1 (ru) |
| RU (1) | RU2238325C2 (ru) |
| TW (1) | TWI238192B (ru) |
Cited By (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| RU2819270C1 (ru) * | 2019-12-23 | 2024-05-16 | СиДжей ЧеилДжеданг Корпорейшн | Микроорганизм для продуцирования L-аминокислоты, обладающий повышенной активностью цитохрома С, и способ получения L-аминокислоты с его использованием |
Families Citing this family (98)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| RU2175351C2 (ru) | 1998-12-30 | 2001-10-27 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО "АГРИ") | Фрагмент днк из escherichia coli, определяющий повышенную продукцию l-аминокислот (варианты), и способ получения l-аминокислот |
| JP2001046067A (ja) * | 1999-08-04 | 2001-02-20 | Ajinomoto Co Inc | 好熱性バチルス属細菌由来のl−リジン生合成系遺伝子 |
| PL341895A1 (en) * | 1999-08-12 | 2001-02-26 | Ajinomoto Kk | Plasmide autonomously replicable in corynebacter bacteria |
| BRPI0016995B1 (pt) * | 2000-01-21 | 2016-03-08 | Ajinomoto Kk | bactéria escherichia coli geneticamente modificada, e, método para produzir l-lisina |
| WO2003072785A2 (en) * | 2002-02-27 | 2003-09-04 | Dsm Ip Assets B.V. | Fermentation process |
| EP2428573A3 (en) | 2002-10-04 | 2012-06-27 | Genecor International, Inc. | Improved production of bacterial strains cross reference to related applications |
| US7371558B2 (en) | 2002-10-04 | 2008-05-13 | E.I. Du Pont De Nemours And Company | Process for the biological production of 1,3-propanediol with high yield |
| BR0304860A (pt) * | 2002-11-11 | 2004-08-31 | Ajinomoto Kk | Método para produzir uma substância alvo pela utilização de uma-bactéria pertencente ao gênero escherichia |
| DE10254074A1 (de) * | 2002-11-19 | 2004-06-17 | Forschungszentrum Jülich GmbH | Verfahren zur mikrobiellen Herstellung von Stoffwechselprodukten |
| EP2348107A3 (fr) * | 2003-02-18 | 2012-07-11 | Metabolic Explorer | Procédé de préparation de microorganismes évolués permettant la création ou la modification de voies métaboliques |
| US7335496B2 (en) * | 2003-06-05 | 2008-02-26 | Ajinomoto Co., Inc. | Method for producing target substance |
| CN100520793C (zh) | 2003-07-29 | 2009-07-29 | 味之素株式会社 | 影响物质生产的代谢流量的测定方法 |
| FR2862068B1 (fr) * | 2003-11-06 | 2007-10-12 | Metabolic Explorer Sa | Souches de microorganismes optimisees pour des voies de biosyntheses consommatrices de nadph |
| JP4380305B2 (ja) * | 2003-11-21 | 2009-12-09 | 味の素株式会社 | 発酵法によるl−アミノ酸の製造法 |
| CN103146593B (zh) | 2004-01-30 | 2015-07-15 | 味之素株式会社 | 生产l-氨基酸的微生物和生产l-氨基酸的方法 |
| EP1724344B1 (en) * | 2004-02-27 | 2011-02-23 | Kyowa Hakko Bio Co., Ltd. | Process for producing amino acid |
| US7344874B2 (en) * | 2004-03-04 | 2008-03-18 | Ajinomoto Co., Inc. | L-glutamic acid-producing microorganism and a method for producing L-glutamic acid |
| US7300776B2 (en) | 2004-04-26 | 2007-11-27 | Ajinomoto Co., Inc. | L-amino acid-producing bacterium and a method for producing L-amino acid |
| US7482140B2 (en) * | 2004-06-15 | 2009-01-27 | Ajinomoto Co., Inc. | L-tyrosine-producing bacterium and a method for producing L-tyrosine |
| US7205132B2 (en) * | 2004-09-10 | 2007-04-17 | Ajinomoto Co., Inc. | L-glutamic acid-producing microorganism and a method for producing L-glutamic acid |
| US7794989B2 (en) * | 2004-12-28 | 2010-09-14 | Ajinomoto Co., Inc. | L-glutamic acid-producing microorganism and a method for producing L-glutamic acid |
| WO2006078039A1 (en) | 2005-01-18 | 2006-07-27 | Ajinomoto Co., Inc. | L-amino acid producing microorganism and a method for producing l-amino acid |
| WO2006129835A1 (en) * | 2005-05-30 | 2006-12-07 | Ajinomoto Co., Inc. | METHOD FOR PRODUCING POLY-gamma-GLUTAMIC ACID AND MICROORGANISM USED IN THE PRODUCTION METHOD |
| US20070004014A1 (en) * | 2005-06-29 | 2007-01-04 | Yuichiro Tsuji | Method for producing l-threonine |
| JP2008283863A (ja) | 2005-08-26 | 2008-11-27 | Ajinomoto Co Inc | L−アミノ酸生産菌及びl−アミノ酸の製造方法 |
| JP2007185184A (ja) * | 2005-12-16 | 2007-07-26 | Ajinomoto Co Inc | L−アミノ酸生産菌及びl−アミノ酸の製造法 |
| EP1979486B1 (en) | 2006-01-30 | 2013-04-17 | Ajinomoto Co., Inc. | L-amino acid producing bacterium and method of producing l-amino acid |
| JP2009095237A (ja) | 2006-02-02 | 2009-05-07 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| JP2009118740A (ja) | 2006-03-03 | 2009-06-04 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| WO2007119574A2 (en) | 2006-03-23 | 2007-10-25 | Ajinomoto Co., Inc. | A method for producing an l-amino acid using bacterium of the enterobacteriaceae family with attenuated expression of a gene coding for small rna |
| JP2009060791A (ja) | 2006-03-30 | 2009-03-26 | Ajinomoto Co Inc | L−アミノ酸生産菌及びl−アミノ酸の製造法 |
| JP2009165355A (ja) | 2006-04-28 | 2009-07-30 | Ajinomoto Co Inc | L−アミノ酸を生産する微生物及びl−アミノ酸の製造法 |
| KR101183001B1 (ko) * | 2006-05-09 | 2012-09-18 | 미쓰이 가가쿠 가부시키가이샤 | 보효소 합성 강화에 의한 히드록시카르복실산류의 생산방법 |
| KR101109402B1 (ko) * | 2006-05-09 | 2012-01-30 | 미쓰이 가가쿠 가부시키가이샤 | 보효소 재생에 의한 히드록시카르복실산류의 생산방법 |
| EP2021458A1 (en) | 2006-05-23 | 2009-02-11 | Ajinomoto Co., Inc. | A method for producing an l-amino acid using a bacterium of the enterobacteriaceae family |
| WO2008010565A2 (en) * | 2006-07-19 | 2008-01-24 | Ajinomoto Co., Inc. | A method for producing an l-amino acid using a bacterium of the enterobacteriaceae family |
| WO2008013996A2 (en) * | 2006-07-27 | 2008-01-31 | Gevo Inc. | Engineered microorganisms for increasing product yield in biotransformations, related methods and systems |
| US9562224B2 (en) * | 2006-09-07 | 2017-02-07 | William Marsh Rice University | Reduced activity of ubiCA in E. coli |
| JP2010017081A (ja) * | 2006-10-10 | 2010-01-28 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| WO2008072761A2 (en) * | 2006-12-11 | 2008-06-19 | Ajinomoto Co., Inc. | Method for producing an l-amino acid |
| RU2006143864A (ru) | 2006-12-12 | 2008-06-20 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО АГРИ) (RU) | СПОСОБ ПОЛУЧЕНИЯ L-АМИНОКИСЛОТ С ИСПОЛЬЗОВАНИЕМ БАКТЕРИИ СЕМЕЙСТВА ENTEROBACTERIACEAE, В КОТОРОЙ ОСЛАБЛЕНА ЭКСПРЕССИЯ ГЕНОВ cynT, cynS, cynX, ИЛИ cynR, ИЛИ ИХ КОМБИНАЦИИ |
| RU2006145712A (ru) * | 2006-12-22 | 2008-06-27 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО АГРИ) (RU) | Способ получения l-аминокислот методом ферментации с использованием бактерий, обладающих повышенной способностью к утилизации глицерина |
| BRPI0806790B1 (pt) | 2007-01-22 | 2017-02-14 | Ajinomoto Kk | microorganismo, e, método para produzir um l-aminoácido |
| JP2010088301A (ja) * | 2007-02-01 | 2010-04-22 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| JP2010110217A (ja) | 2007-02-22 | 2010-05-20 | Ajinomoto Co Inc | L−アミノ酸生産菌及びl−アミノ酸の製造法 |
| JP2010226956A (ja) * | 2007-07-23 | 2010-10-14 | Ajinomoto Co Inc | L−リジンの製造法 |
| JP2010263790A (ja) * | 2007-09-04 | 2010-11-25 | Ajinomoto Co Inc | アミノ酸生産微生物及びアミノ酸の製造法 |
| WO2009031565A1 (ja) | 2007-09-04 | 2009-03-12 | Ajinomoto Co., Inc. | アミノ酸生産微生物及びアミノ酸の製造法 |
| RU2395579C2 (ru) * | 2007-12-21 | 2010-07-27 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО АГРИ) | СПОСОБ ПОЛУЧЕНИЯ L-АМИНОКИСЛОТЫ С ИСПОЛЬЗОВАНИЕМ БАКТЕРИИ, ПРИНАДЛЕЖАЩЕЙ К РОДУ Escherichia |
| JP2011067095A (ja) | 2008-01-10 | 2011-04-07 | Ajinomoto Co Inc | 発酵法による目的物質の製造法 |
| JP5526785B2 (ja) | 2008-01-23 | 2014-06-18 | 味の素株式会社 | L−アミノ酸の製造法 |
| RU2008105793A (ru) | 2008-02-19 | 2009-08-27 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО АГРИ) (RU) | Способ конструирования оперонов, содержащих трансляционно сопряженные гены, бактерия, содержащая такой оперон, способ продукции полезного метаболита и способ мониторинга экспрессии гена |
| JP2011167071A (ja) * | 2008-05-22 | 2011-09-01 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| ES2624913T3 (es) | 2008-09-08 | 2017-07-18 | Ajinomoto Co., Inc. | Microorganismo que produce un L-aminoácido y procedimiento para producir un L-aminoácido |
| KR101123213B1 (ko) * | 2008-09-11 | 2012-03-19 | 부산대학교 산학협력단 | 미생물 전자전달계 및 탄소원 대사경로가 재설계된 재조합 대장균 생촉매 |
| JP2012029565A (ja) | 2008-11-27 | 2012-02-16 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| JP2010142200A (ja) | 2008-12-22 | 2010-07-01 | Ajinomoto Co Inc | L−リジンの製造法 |
| EP2382320B1 (en) | 2009-01-23 | 2018-04-18 | Ajinomoto Co., Inc. | Process for producing l-amino acids employing bacteria of the enterobacteriacea family in a culture medium with controlled glycerol concentration |
| JP5521347B2 (ja) | 2009-02-16 | 2014-06-11 | 味の素株式会社 | L−アミノ酸生産菌及びl−アミノ酸の製造法 |
| JPWO2011013707A1 (ja) | 2009-07-29 | 2013-01-10 | 味の素株式会社 | L−アミノ酸の製造法 |
| JP2012223092A (ja) | 2009-08-28 | 2012-11-15 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| JP2013013329A (ja) | 2009-11-06 | 2013-01-24 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| RU2460793C2 (ru) | 2010-01-15 | 2012-09-10 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО АГРИ) | Способ получения l-аминокислот с использованием бактерий семейства enterobacteriaceae |
| RU2010101135A (ru) | 2010-01-15 | 2011-07-20 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО АГРИ) (RU) | Бактерия семейства enterobacteriaceae - продуцент l-аспартата или метаболитов, производных l-аспартата, и способ получения l-аспартата или метаболитов, производных l-аспартата |
| JP2013074795A (ja) | 2010-02-08 | 2013-04-25 | Ajinomoto Co Inc | 変異型rpsA遺伝子及びL−アミノ酸の製造法 |
| RU2471868C2 (ru) | 2010-02-18 | 2013-01-10 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО АГРИ) | Мутантная аденилатциклаза, днк, кодирующая ее, бактерия семейства enterobacteriaceae, содержащая указанную днк, и способ получения l-аминокислот |
| RU2010122646A (ru) | 2010-06-03 | 2011-12-10 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО АГРИ) (RU) | Способ получения l-аминокислоты с использованием бактерии семейства enterobacteriaceae, в которой ослаблена экспрессия генов, кодирующих транспортер лизина/аргинина/орнитина |
| RU2471870C2 (ru) | 2010-06-03 | 2013-01-10 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО АГРИ) | СПОСОБ ПОЛУЧЕНИЯ L-АРГИНИНА И L-ЦИТРУЛЛИНА С ИСПОЛЬЗОВАНИЕМ БАКТЕРИИ СЕМЕЙСТВА ENTEROBACTERIACEAE, В КОТОРОЙ ОСЛАБЛЕНА ЭКСПРЕССИЯ ГЕНА pepA |
| RU2501858C2 (ru) | 2010-07-21 | 2013-12-20 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО АГРИ) | СПОСОБ ПОЛУЧЕНИЯ L-АМИНОКИСЛОТЫ С ИСПОЛЬЗОВАНИЕМ БАКТЕРИИ СЕМЕЙСТВА Enterobacteriaceae |
| RU2482188C2 (ru) | 2010-07-21 | 2013-05-20 | Закрытое акционерное общество "Научно-исследовательский институт "Аджиномото-Генетика" (ЗАО АГРИ) | СПОСОБ ПОЛУЧЕНИЯ L-АРГИНИНА С ИСПОЛЬЗОВАНИЕМ БАКТЕРИЙ РОДА Escherichia, В КОТОРОЙ ИНАКТИВИРОВАН ОПЕРОН astCADBE |
| JP2014036576A (ja) | 2010-12-10 | 2014-02-27 | Ajinomoto Co Inc | L−アミノ酸の製造法 |
| RU2011134436A (ru) | 2011-08-18 | 2013-10-27 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО "АГРИ") | Способ получения l-аминокислоты с использованием бактерии семейства enterobacteriaceae, обладающей повышенной экспрессией генов каскада образования флагелл и клеточной подвижности |
| JP2015013812A (ja) | 2011-11-01 | 2015-01-22 | 味の素株式会社 | 植物ウイルスの感染抑制剤およびそれを用いた植物ウイルス感染抑制方法 |
| RU2013118637A (ru) | 2013-04-23 | 2014-10-27 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО "АГРИ") | СПОСОБ ПОЛУЧЕНИЯ L-АМИНОКИСЛОТ С ИСПОЛЬЗОВАНИЕМ БАКТЕРИИ СЕМЕЙСТВА ENTEROBACTERIACEAE, В КОТОРОЙ РАЗРЕГУЛИРОВАН ГЕН yjjK |
| BR112015007916B1 (pt) | 2013-05-13 | 2023-04-04 | Ajinomoto Co., Inc | Método para produzir l-aminoácido |
| MX2016001187A (es) * | 2013-07-31 | 2016-04-29 | Hoffmann La Roche | Metodo para la produccion recombinante de un polipeptido en celulas procariotas. |
| RU2013140115A (ru) | 2013-08-30 | 2015-03-10 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО "АГРИ") | СПОСОБ ПОЛУЧЕНИЯ L-АМИНОКИСЛОТ С ИСПОЛЬЗОВАНИЕМ БАКТЕРИИ СЕМЕЙСТВА Enterobacteriaceae, В КОТОРОЙ НАРУШЕНА ЭКСПРЕССИЯ КЛАСТЕРА ГЕНОВ znuACB |
| JP2016192903A (ja) | 2013-09-17 | 2016-11-17 | 味の素株式会社 | 海藻由来バイオマスからのl−アミノ酸の製造方法 |
| CN106459857B (zh) | 2013-10-02 | 2019-04-19 | 味之素株式会社 | 氨控制装置及氨控制方法 |
| RU2013144250A (ru) | 2013-10-02 | 2015-04-10 | Закрытое акционерное общество "Научно-исследовательский институт Аджиномото-Генетика" (ЗАО "АГРИ") | СПОСОБ ПОЛУЧЕНИЯ L-АМИНОКИСЛОТ С ИСПОЛЬЗОВАНИЕМ БАКТЕРИИ СЕМЕЙСТВА Enterobacteriaceae, В КОТОРОЙ ОСЛАБЛЕНА ЭКСПРЕССИЯ ГЕНА, КОДИРУЮЩЕГО ФОСФАТНЫЙ ТРАНСПОРТЕР |
| JP6459962B2 (ja) | 2013-10-21 | 2019-01-30 | 味の素株式会社 | L−アミノ酸の製造法 |
| EP3061828B1 (en) | 2013-10-23 | 2024-08-28 | Ajinomoto Co., Inc. | Method for producing target substance |
| RU2015120052A (ru) | 2015-05-28 | 2016-12-20 | Аджиномото Ко., Инк. | Способ получения L-аминокислоты с использованием бактерии семейства Enterobacteriaceae, в которой ослаблена экспрессия гена gshA |
| WO2017146195A1 (en) | 2016-02-25 | 2017-08-31 | Ajinomoto Co., Inc. | A method for producing l-amino acids using a bacterium of the family enterobacteriaceae overexpressing a gene encoding an iron exporter |
| JP7066977B2 (ja) | 2017-04-03 | 2022-05-16 | 味の素株式会社 | L-アミノ酸の製造法 |
| EP3861109A1 (en) | 2018-10-05 | 2021-08-11 | Ajinomoto Co., Inc. | Method for producing target substance by bacterial fermentation |
| BR112021011882A2 (pt) | 2018-12-27 | 2021-09-08 | Ajinomoto Co., Inc. | Método para produzir um l-aminoácido básico |
| BR112021014194A2 (pt) | 2019-02-22 | 2021-12-28 | Ajinomoto Kk | Método para a produção de um l-aminoácido |
| BR112021017870A2 (pt) | 2019-04-05 | 2021-12-07 | Ajinomoto Kk | Método para produzir um l-aminoácido |
| CN111909917B (zh) * | 2019-05-10 | 2022-10-14 | 中国科学院微生物研究所 | 一种内溶素Lysmeta1及其编码基因与应用 |
| JP7655312B2 (ja) | 2019-09-25 | 2025-04-02 | 味の素株式会社 | 細菌の発酵によるl-アミノ酸の製造方法 |
| AU2020414201B2 (en) * | 2019-12-23 | 2023-10-05 | Cj Cheiljedang Corporation | Microorganism for producing L-amino acid having increased cytochrome C activity, and L-amino acid production method using same |
| CN113106075B (zh) * | 2021-02-25 | 2022-06-14 | 齐鲁工业大学 | 一种细胞色素氧化酶突变体及其应用 |
| KR102654301B1 (ko) * | 2021-06-23 | 2024-04-04 | 씨제이제일제당 주식회사 | NADH:quinone 산화환원효소의 발현이 조절된 재조합 미생물 및 이를 이용한 O-포스포세린, 시스테인 및 이의 유도체의 생산방법 |
| EP4505875A1 (en) | 2022-04-04 | 2025-02-12 | Ajinomoto Co., Inc. | Method for controlling parasitic plants |
| JP7839035B2 (ja) * | 2022-06-27 | 2026-04-01 | 花王株式会社 | 芳香族化合物の製造方法 |
| KR102922221B1 (ko) | 2023-04-26 | 2026-02-05 | (주)아이에스피 | 제조 공정 중 화학용액 자동 분석 시스템 |
| KR20240171498A (ko) | 2023-05-30 | 2024-12-09 | 주식회사 아이에스피 | 화학 공정 실시간 관리 시스템 |
Citations (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4783403A (en) * | 1984-02-08 | 1988-11-08 | Kyowa Hakko Kogyo Co., Ltd. | Process for producing l-phenylalanine |
| US5017483A (en) * | 1986-02-20 | 1991-05-21 | Kyowa Hakko Kogyo Co., Ltd. | Process for producing L-threonine |
| RU2144565C1 (ru) * | 1998-11-12 | 2000-01-20 | Государственный научный центр вирусологии и биотехнологии "Вектор" | Рекомбинантная плазмидная днк pq_f35, кодирующая гибридный полипептид f 35, обладающий антигенными и иммуногенными свойствами белка vp 35 вируса марбург, способ ее получения и штамм бактерий escherichia coli - сверхпродуцент рекомбинантного полипептида f 35 |
Family Cites Families (8)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4104124A (en) * | 1976-08-30 | 1978-08-01 | Louisiana State University Foundation | Process for the production of single cell protein and amino acids |
| DE4027453A1 (de) * | 1990-08-30 | 1992-03-05 | Degussa | Neue plasmide aus corynebacterium glutamicum und davon abgeleitete plasmidvektoren |
| RU2182173C2 (ru) * | 1993-10-28 | 2002-05-10 | Адзиномото Ко., Инк. | Способ получения l-аминокислоты |
| FI980551A7 (fi) * | 1998-03-11 | 1999-09-12 | Valtion Teknillinen | Transformoidut mikro-organismit, joilla on parannettuja ominaisuuksia |
| US6074830A (en) * | 1998-06-09 | 2000-06-13 | E. I. Du Pont De Nemours & Company | 3,4-dihydroxy-2-butanone 4-phosphate synthase |
| JPH11346776A (ja) * | 1998-06-11 | 1999-12-21 | Ajinomoto Co Inc | ブレビバクテリウム・ラクトファーメンタムのシトクロムbd型キノールオキシダーゼ遺伝子 |
| US7220571B2 (en) * | 2000-09-28 | 2007-05-22 | Archer-Daniels-Midland Company | Escherichia coli strains which over-produce L-threonine and processes for the production of L-threonine by fermentation |
| CN1890377B (zh) * | 2003-10-21 | 2013-06-05 | 嘉吉有限公司 | 生产莫纳甜和莫纳甜前体 |
-
2000
- 2000-07-05 JP JP2000204252A patent/JP4380029B2/ja not_active Expired - Lifetime
-
2001
- 2001-07-02 AU AU54169/01A patent/AU782560B2/en not_active Expired
- 2001-07-02 AT AT09003058T patent/ATE501265T1/de not_active IP Right Cessation
- 2001-07-02 EP EP09003058A patent/EP2067864B1/en not_active Expired - Lifetime
- 2001-07-02 DK DK09003058.6T patent/DK2067864T3/da active
- 2001-07-02 ES ES01116050T patent/ES2331601T3/es not_active Expired - Lifetime
- 2001-07-02 AT AT01116050T patent/ATE442453T1/de not_active IP Right Cessation
- 2001-07-02 DE DE60144205T patent/DE60144205D1/de not_active Expired - Lifetime
- 2001-07-02 DK DK01116050T patent/DK1170376T3/da active
- 2001-07-02 EP EP01116050A patent/EP1170376B1/en not_active Expired - Lifetime
- 2001-07-02 DE DE60139838T patent/DE60139838D1/de not_active Expired - Lifetime
- 2001-07-02 ES ES09003058T patent/ES2360174T3/es not_active Expired - Lifetime
- 2001-07-03 MY MYPI20013161A patent/MY127434A/en unknown
- 2001-07-04 PE PE2001000664A patent/PE20020172A1/es not_active Application Discontinuation
- 2001-07-04 KR KR1020010039675A patent/KR100805644B1/ko not_active Expired - Lifetime
- 2001-07-04 RU RU2001118542A patent/RU2238325C2/ru active
- 2001-07-04 PL PL348448A patent/PL206590B1/pl unknown
- 2001-07-04 BR BRPI0102666A patent/BRPI0102666B1/pt active IP Right Grant
- 2001-07-05 TW TW090116463A patent/TWI238192B/zh not_active IP Right Cessation
- 2001-07-05 US US09/897,988 patent/US8586334B2/en not_active Expired - Lifetime
- 2001-07-05 CN CNB01125954XA patent/CN1280419C/zh not_active Expired - Lifetime
-
2013
- 2013-10-16 US US14/055,302 patent/US20140045219A1/en not_active Abandoned
Patent Citations (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4783403A (en) * | 1984-02-08 | 1988-11-08 | Kyowa Hakko Kogyo Co., Ltd. | Process for producing l-phenylalanine |
| US5017483A (en) * | 1986-02-20 | 1991-05-21 | Kyowa Hakko Kogyo Co., Ltd. | Process for producing L-threonine |
| RU2144565C1 (ru) * | 1998-11-12 | 2000-01-20 | Государственный научный центр вирусологии и биотехнологии "Вектор" | Рекомбинантная плазмидная днк pq_f35, кодирующая гибридный полипептид f 35, обладающий антигенными и иммуногенными свойствами белка vp 35 вируса марбург, способ ее получения и штамм бактерий escherichia coli - сверхпродуцент рекомбинантного полипептида f 35 |
Cited By (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| RU2819270C1 (ru) * | 2019-12-23 | 2024-05-16 | СиДжей ЧеилДжеданг Корпорейшн | Микроорганизм для продуцирования L-аминокислоты, обладающий повышенной активностью цитохрома С, и способ получения L-аминокислоты с его использованием |
Also Published As
| Publication number | Publication date |
|---|---|
| CN1280419C (zh) | 2006-10-18 |
| JP4380029B2 (ja) | 2009-12-09 |
| AU782560B2 (en) | 2005-08-11 |
| PL348448A1 (en) | 2002-01-14 |
| DK2067864T3 (da) | 2011-06-27 |
| EP1170376A1 (en) | 2002-01-09 |
| ES2360174T3 (es) | 2011-06-01 |
| EP1170376B1 (en) | 2009-09-09 |
| KR20020005441A (ko) | 2002-01-17 |
| ATE442453T1 (de) | 2009-09-15 |
| US8586334B2 (en) | 2013-11-19 |
| CN1335401A (zh) | 2002-02-13 |
| US20140045219A1 (en) | 2014-02-13 |
| MY127434A (en) | 2006-12-29 |
| ATE501265T1 (de) | 2011-03-15 |
| PL206590B1 (pl) | 2010-08-31 |
| BRPI0102666B1 (pt) | 2017-05-02 |
| AU5416901A (en) | 2002-01-10 |
| BR0102666A (pt) | 2002-02-26 |
| TWI238192B (en) | 2005-08-21 |
| KR100805644B1 (ko) | 2008-02-26 |
| DE60139838D1 (de) | 2009-10-22 |
| JP2002017363A (ja) | 2002-01-22 |
| EP2067864A1 (en) | 2009-06-10 |
| ES2331601T3 (es) | 2010-01-11 |
| PE20020172A1 (es) | 2002-03-22 |
| DK1170376T3 (da) | 2009-12-14 |
| EP2067864B1 (en) | 2011-03-09 |
| DE60144205D1 (de) | 2011-04-21 |
| US20020160461A1 (en) | 2002-10-31 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| JP4380029B2 (ja) | 微生物を利用した物質の製造法 | |
| KR100823044B1 (ko) | 트레오닌 및 이소류신의 제조방법 | |
| US7833761B2 (en) | Amino acid producing microorganism and a method for producing an amino acid | |
| JP4380305B2 (ja) | 発酵法によるl−アミノ酸の製造法 | |
| JP3861290B2 (ja) | ストレス耐性微生物及び発酵生産物の製造法 | |
| EP2100957A1 (en) | Process for production of l-amino acid | |
| EP1484410A1 (en) | Fermentation methods and genetically modified bacteria with increased substrate and byproduct uptake. | |
| EP1740694B1 (en) | L-tryptophan-producing bacterium and a method for producing l-tryptophan | |
| US7163810B2 (en) | Method for producing target substance | |
| US20050106688A1 (en) | Method for producing L-amino acid | |
| WO2007037460A9 (en) | An l-amino acid-producing bacterium and a method for producing l-amino acids | |
| WO2001005959A1 (fr) | Obtention d'une substance cible par un procede de fermentation | |
| US6579699B1 (en) | Method for producing fermentative product and stress-resistant microorganism | |
| ES2659513T3 (es) | Microorganismo que produce L-treonina teniendo el gen tyrR inactivado, procedimiento de producción del mismo y procedimiento de producción de L-treonina usando el microorganismo | |
| JP2007117076A (ja) | L−アミノ酸生産菌及びl−アミノ酸の製造法 | |
| JP2007117077A (ja) | L−アミノ酸生産菌及びl−アミノ酸の製造法 | |
| JP2003204783A (ja) | 発酵法による目的物質の製造法 |